ε-聚赖氨酸(ε-poly-L-lysine,ε-PL)是一种由L-赖氨酸(L-Lys)单体在合成酶的催化作用下通过α—COOH 和ε—NH2脱水缩合连接而成的同型氨基酸聚合物[1]。它具备水溶性、生物降解性、可食用性、热稳定性及对人畜与环境安全等诸多优良特性,因此被广泛用作食品、化妆品、保健品等行业的防腐剂。目前,日本、韩国、美国、中国等多个国家已经通过了ε-PL的安全认证,并将ε-PL认定为安全食品防腐剂[2]。
当前,ε-PL主要通过链霉菌的深层发酵生产。过去数十年间,科研人员已开展大量研究以提高其产量,包括诱变育种改良菌株、优化培养基配方、控制发酵pH值等策略[3]。例如,Yu等[4]采用常压室温等离子体诱变技术,构建了发酵性能提升的S.albulus突变株;另有研究对比了不同培养基组分和发酵条件下的ε-PL产量,通过外源添加等方式使ε-PL最高产量达到4.13 g/L[5];吴梦萍等[6]研究ε-PL高产菌S.albulus WG-608在5 L发酵罐不同阶段的pH值与溶解氧(dissolved oxygen,DO)进行了系统优化,并构建了一种新的pH-DO组合调控策略。
近年来,随着分子生物学的发展,基因重组技术被有效应用于高产ε-PL菌株的构建。张重阳等[7]在研究中挖掘了5个L-Lys合成途径关键基因,发现过表达磷酸烯醇式丙酮酸羧化酶基因(phosphoenolpyruvate carboxylase,ppc)、丙酮酸羧化酶基因(pyruvate carboxylase,pyc)和ε-PL合成酶基因(ε-poly-L-lysine synthetase,pls)能有效促进S.albulus WG608合成ε-PL。还有研究提出了多组学指导的代谢工程方法,通过增强腺嘌呤核苷三磷酸(adenosine triphosphate,ATP)供应、L-Lys合成及ε-PL合成酶表达,所构建的工程菌在5 L生物反应器中ε-PL产量达到77.16 g/L[8]。近期,研究人员通过在S.albulus中改造L-Lys转运蛋白,构建了高效ε-PL合成细胞工厂,经筛选获得最优转运蛋白GL6157,工程菌株在补料分批发酵(5 L发酵罐)中ε-PL产量可达94.0 g/L[9]。
ε-PL生产中常用的碳源为葡萄糖或甘油,这类碳源(葡萄糖)占以葡萄糖为唯一碳源培养基(M3G培养基)总底物成本的62.0%[10],因此开发更经济的替代碳源至关重要。已有研究表明,甘蔗糖蜜[11]、木薯渣[12]等含糖农业废弃物可用于ε-PL生产。甘薯是中国第四大粮食作物,年产量量约1亿t,占全球总产量的80%左右[13],主要用于淀粉加工[14]。甘薯渣是淀粉提取过程中产生的副产物,主要成分包括淀粉、纤维素、蛋白质。由于黏度高、易腐烂变质,大部分甘薯渣未被有效利用,直接丢弃不仅造成严重环境污染,还降低了其经济价值[15]。将甘薯渣进行深加工和综合利用不仅可以减少环境污染,还可以增加其经济价值,实现资源的可持续利用[16]。目前,尚未有利用甘薯渣生产ε-PL的相关报道。
本研究旨在探究甘薯渣作为碳源用于S.albulus发酵生产ε-PL的可行性:首先优化甘薯渣的酶解工艺,获得含可发酵糖的甘薯渣水解液(sweet potato residue hydrolysate,SPRH);其次评估SPRH用于ε-PL生产的效果;随后分析S.albulus在SPRH中的生理特性;最后通过对比M3G培养基与SPRH培养基下的转录组差异,揭示SPRH中ε-PL的合成机制。本研究可为拓展ε-PL生产原料种类、降低生产成本提供重要参考。
1 材料与方法
1.1 材料与试剂
糖化酶(20 000 U/g),北京索莱宝科技有限公司;α-淀粉酶(50 000 U/g),北京奥博星生物技术有限责任公司;纤维素酶,上海源叶生物科技有限公司;酵母粉,上海生工生物工程股份有限公司;琼脂粉,上海博微生物科技有限公司;蛋白胨,上海盛思生化科技有限公司;葡萄糖、氨水、鱼粉、MgSO4,上海阿拉丁生化技术有限公司;KH2PO4、K2HPO4、FeSO4、ZnSO4,上海埃彼化学试剂有限公司;己糖激酶试剂盒、6-磷酸葡萄糖脱氢酶试剂盒、天冬氨酸激酶试剂盒,上海酶联生物科技有限公司;消泡剂,上海西宝生物科技股份有限公司。
本研究使用的S.albulus ZY1来自中国食品发酵工业研究院,菌株编号CICC 24706。甘薯渣为安徽王将军淀粉有限公司提取淀粉等物质后所剩的废渣,自然干燥后,粉碎过80目筛,避光冷藏保存。
1.2 培养基
斜面培养基(g/L):葡萄糖10,蛋白胨2,酵母浸粉1,琼脂粉20。
M3G培养基(g/L):葡萄糖50,酵母粉5,(NH4)2SO4 10,MgSO4 0.50,K2HPO4 0.80,KH2PO4 1.36,FeSO4 0.03,ZnSO4 0.04。
SPRH培养基(g/L):以SPRH替代M3G培养基中的葡萄糖,SPRH添加量为60 g/L,其余成分与M3G一致。
5 L发酵罐培养基(g/L):鱼粉23,(NH4)2SO4 11,其余成分同M3G。
所有培养基在灭菌前调节pH值至6.8(斜面培养基除外),于121 ℃灭菌15 min。
1.3 仪器与设备
BSA224S电子天平,赛多利斯科学仪器有限公司;RE-201D升降恒温水浴锅,上海跃进医疗器械厂;SHB-Ⅲ循环水式真空泵,巩义市予华仪器有限责任公司;RE-201D旋转蒸发仪,巩义市瑞德仪器设备有限公司;SW-CJ-2FD超净工作台,苏州净化设备有限公司;5424R超速冷冻离心机;上海卢湘仪离心机仪器有限公司;GNP-9050隔水式恒温培养箱,上海精宏实验设备有限公司;DHG-9070B电热恒温鼓风干燥箱,上海申贤恒温设备厂;TGL-18M高速冷冻离心机,上海安亭科学仪器厂;UV-2450 T6紫外可见分光光度计,北京普析通用仪器有限责任公司;722可见分光光度计,上海欣茂仪器有限公司;SYC-C恒温水浴振荡器,上海新苗医疗器械制造有限公司;ZQLY-180S摇床,上海知楚有限公司;BIOTECH-5JG-7000A 5L发酵罐,上海保兴生物设备工程有限公司;SBA-40C生物传感分析仪,齐鲁工业大学-山东省科学院。
1.4 甘薯渣的水解
在5 L烧杯中采用α-淀粉酶和糖化酶对甘薯渣进行酶解:称取 200 g 甘薯渣粉末,加入1 800 mL蒸馏水,配制固形物质量分数为 10% 的悬浮液,100 r/min机械搅拌,75 ℃糊化1 h;糊化后的混合物调节pH值至6.1,加入1.0%(质量分数)的α-淀粉酶,在66 ℃下液化80 min;液化完成后冷却至65 ℃,调节pH值至5.6,加入0.2%(质量分数)的糖化酶,在60 ℃下糖化100 min。水解混合物先经8层纱布过滤,滤液在7 000 r/min下离心10 min,取上清液置于1 000 mL锥形瓶中;通过减压蒸发将上清液(即SPRH)的葡萄糖浓缩至约600 g/L,分装于500 mL锥形瓶中,4 ℃冷藏备用[12]。
1.5 实验方法
1.5.1 培养条件
将S.albulus接种至斜面培养基,30 ℃培养7~10 d至孢子成熟;取成熟孢子接种至种子培养基瓶中,30 ℃、200 r/min振荡培养24 h获得种子液。
摇瓶发酵:以体积分数10%的接种量将种子液接入装有50 mL发酵培养基的摇瓶中,30 ℃、200 r/min振荡培养3 d。
5 L发酵罐分批发酵:发酵罐工作体积3 L,向5 L发酵罐中加入3 L发酵培养基,接入300 mL种子液进行发酵,发酵至培养基葡萄糖质量浓度降至10 g/L以下。
5 L发酵罐补料-分批发酵:基础发酵操作同上述分批发酵;当培养基中葡萄糖、酵母粉浓度低于设定调控阈值时,采用连续流加方式进行补料,持续发酵直至ε-PL质量浓度不再上升。
1.5.2 酶活力测定
分别取发酵48、72 h的发酵液,4 500×g离心10 min,弃去上清液;用每 100 mL 含 0.2 g KCl的溶液洗涤并离心2次菌体沉淀,随后重悬于200 mmol/L Tris-HCl缓冲液(pH值7.5,含 20 mL 甘油与 80 mL 缓冲液的混合体系、5 mmol/L MgCl2)中;将菌悬液在600 W功率下进行超声波破碎(工作1 s、间隔2 s,总处理时间10 min),破碎后于4 ℃、16 000×g离心20 min,收集上清液即为粗酶液[17]。采用该粗酶液,分别测定己糖激酶(hexokinase,HK)、天冬氨酸激酶(aspartokinase,ASK)、葡萄糖-6-磷酸脱氢酶(glucose-6-phosphate dehydrogenase,G6PDH)和ε-PL合成酶的活力。
HK活力测定:按细菌数量(104 CFU):提取液体积(mL)=500~1 000∶1处理菌液,冰浴超声波破碎(超声波输出功率为额定功率的20%,超声波3 s、间隔10 s,30次),4 ℃、8 000×g离心10 min,上清液冰浴待测。分光光度计预热30 min,340 nm波长下用蒸馏水调零;试剂于25 ℃预热10 min后,依次加入石英比色皿(试剂一400 μL、试剂二400 μL、试剂三80 μL、试剂四80 μL、试剂五40 μL、试剂六8 μL、样本30 μL),立即混匀计时,记录20 s时的吸光度值A1和320 s时的吸光度值A2,计算ΔA=A1-A2。
ASK活力测定:菌液处理(超声波破碎、离心条件)同HK活力测定,上清液冰浴待测。分光光度计预热30 min以上,505 nm波长下用蒸馏水调零。测定管:待测样本20 μL+试剂一100 μL,25 ℃反应20 min后,加入试剂二100 μL、试剂三1 000 μL;对照管:煮沸10 min待测样本20 μL+蒸馏水100 μL,25 ℃反应20 min后,加入试剂二100 μL、试剂三1 000 μL;2组均于后续试剂添加后25 ℃反应20 min,室温放置10 min后测定吸光度,计算ΔA=A测定-A对照[18]。
G6PDH活力测定:菌液处理同HK活力测定,上清液冰浴待测。分光光度计预热30 min以上,340 nm波长下用蒸馏水调零;试剂二、三溶于试剂一后25 ℃水浴10 min,石英比色皿中分别加入50 μL样本、950 μL试剂一,混匀后记录1 min时的吸光度值A1和6 min时的吸光度值A2,计算ΔA=A2-A1[19]。
ε-PL合成酶活力测定:反应体系包含粗酶液200 μL、100 mmol/L L-Lys 100 μL、50 mmol/L ATP 100 μL、50 mmol/L MgCl2 100 μL、50 mmol/L二硫苏糖醇200 μL、100 mmol/L Tris-HCl缓冲液(pH 8.0)400 μL。30 ℃反应1 h后,添加三氯乙酸水溶液(0.2 g/mL)终止反应,12 000×g离心10 min;高效液相色谱测定剩余L-Lys含量,计算酶活力。酶活力单位定义:1 mL粗酶液1 s内催化消耗1 pmol L-Lys对应的酶催化活力为 1 U[20]。
1.5.3 转录组分析
分别取SPRH培养基和M3G培养基中发酵48 h的菌液各30 mL,4 ℃、8 000 r/min离心5 min,弃尽上清液;收集沉淀菌体,用生理盐水洗涤2次(每次洗涤后需重复上述离心操作以分离菌体与洗涤液),随后将洗净的菌体置于液氮中冷冻30 min,用于后续总RNA提取[21]。总RNA提取完成后,委托中国上海美吉生物医药科技有限公司在Illumina HiSeq 2000平台上进行测序[22];测序所得数据使用ClusterProfiler软件进行GO功能富集分析与KEGG通路富集分析。
1.5.4 5 L发酵罐分批及补料分批发酵
将M3G培养基和SPRH发酵培养基分别装入5 L发酵罐,同时对发酵罐、培养基及消泡剂进行121 ℃、20 min高压灭菌;接种后,当发酵液pH值从初始6.8自然降至3.8时,通过自动补加125 g/L的氨水,维持pH值稳定在3.8左右,直至发酵结束;发酵初期DO控制在50%,搅拌转速初始设定为50 r/min,搅拌电机实时输出功率达到额定功率的50%时,将通气量从0.4 vvm逐步提升至2.0 vvm(每次调整幅度不超过0.5 vvm),期间维持DO在20%;通过对应在线电极实时监测DO、pH值、消泡状态及温度,定期取样测定发酵液中葡萄糖浓度、ε-PL浓度和菌体浓度。当葡萄糖质量浓度<10 g/L时,结束分批发酵。
补料分批发酵前期操作与分批发酵一致,额外配制葡萄糖质量浓度为500 g/L的SPRH浓缩液及酵母提取物浓缩液作为补料;当发酵液中葡萄糖浓度<10 g/L时,持续补加上述2种浓缩液,维持发酵液中葡萄糖质量浓度在10 g/L左右,直至ε-PL浓度连续2~3次取样检测无明显增加时,终止发酵。
1.5.5 分析方法
葡萄糖浓度测定:采用生物传感分析仪直接测定;还原糖浓度采用3,5-二硝基水杨酸比色法,以葡萄糖标准曲线定量。
菌体干重测定:发酵液5 000×g离心15 min,菌体沉淀用蒸馏水洗涤2次,80 ℃烘干至恒重,称重计算。
ε-PL产量测定:发酵液5 000×g离心15 min,上清液用于分析ε-PL浓度,菌体沉淀采用干重法测定菌体浓度[7]。
1.6 数据统计分析
所有实验至少重复3次,数据以“平均值±标准差”表示;采用单因素方差分析和Duncan多重比较检验分析差异显著性(P<0.05)。
2 结果与分析
2.1 以SPRH为碳源的ε-PL生产
通过α-淀粉酶与糖化酶结合糊化预处理的方法对甘薯渣进行水解,最终确定α-淀粉酶和糖化酶的最优添加量(质量分数)分别为1.0%、0.2%。在此优化条件下, SPRH中的葡萄糖质量浓度可达53 g/L。随后在摇瓶中探究了SPRH培养基中初始葡萄糖质量浓度对S.albulus ZY1产ε-PL的影响。随着培养基中初始葡萄糖质量浓度的增加,发酵液中ε-PL产量与菌体干重均呈现先升高后降低的变化趋势,当SPRH培养基中初始葡萄糖质量浓度为50 g/L时,ε-PL产量与干重均达到最大值,分别为1.55 g/L、4.8 g/L,其中ε-PL产量相较于对照组(M3G培养基)提升了9.15%;当初始葡萄糖质量浓度进一步升高至60 g/L时,ε-PL产量与干重均出现显著下降(P<0.05),可能是由于SPRH中含有的特定成分对S.albulus ZY1的生长产生了抑制作用[23]。
基于优化后的培养基配方见电子版增强出版附表1(https://doi.org/10.13995/j.cnki.11-1802/ts.045263,下同),对SPRH摇瓶发酵过程的曲线进行分析(图1-b),发现在SPRH培养基中,ε-PL产量随发酵时间的延长而持续增加,但发酵后期的产量增长速率明显减缓;对于初始葡萄糖质量浓度为50 g/L的SPRH培养基,发酵至48 h时,体系中残余葡萄糖质量浓度仅为13 g/L,而采用M3G培养基的对照组在相同发酵时间下,残余葡萄糖质量浓度为15 g/L(附图2),这表明SPRH培养基中葡萄糖的利用率更高。此外,整个发酵过程中体系pH值呈持续的下降趋势,从初始的6.8逐步降至发酵结束时的3.5左右;菌体干重在发酵前60 h内持续增长, 60 h后则开始下降;发酵结束时,SPRH组的干重与ε-PL产量相较于对照组,分别提高了12.3%、6.2%。
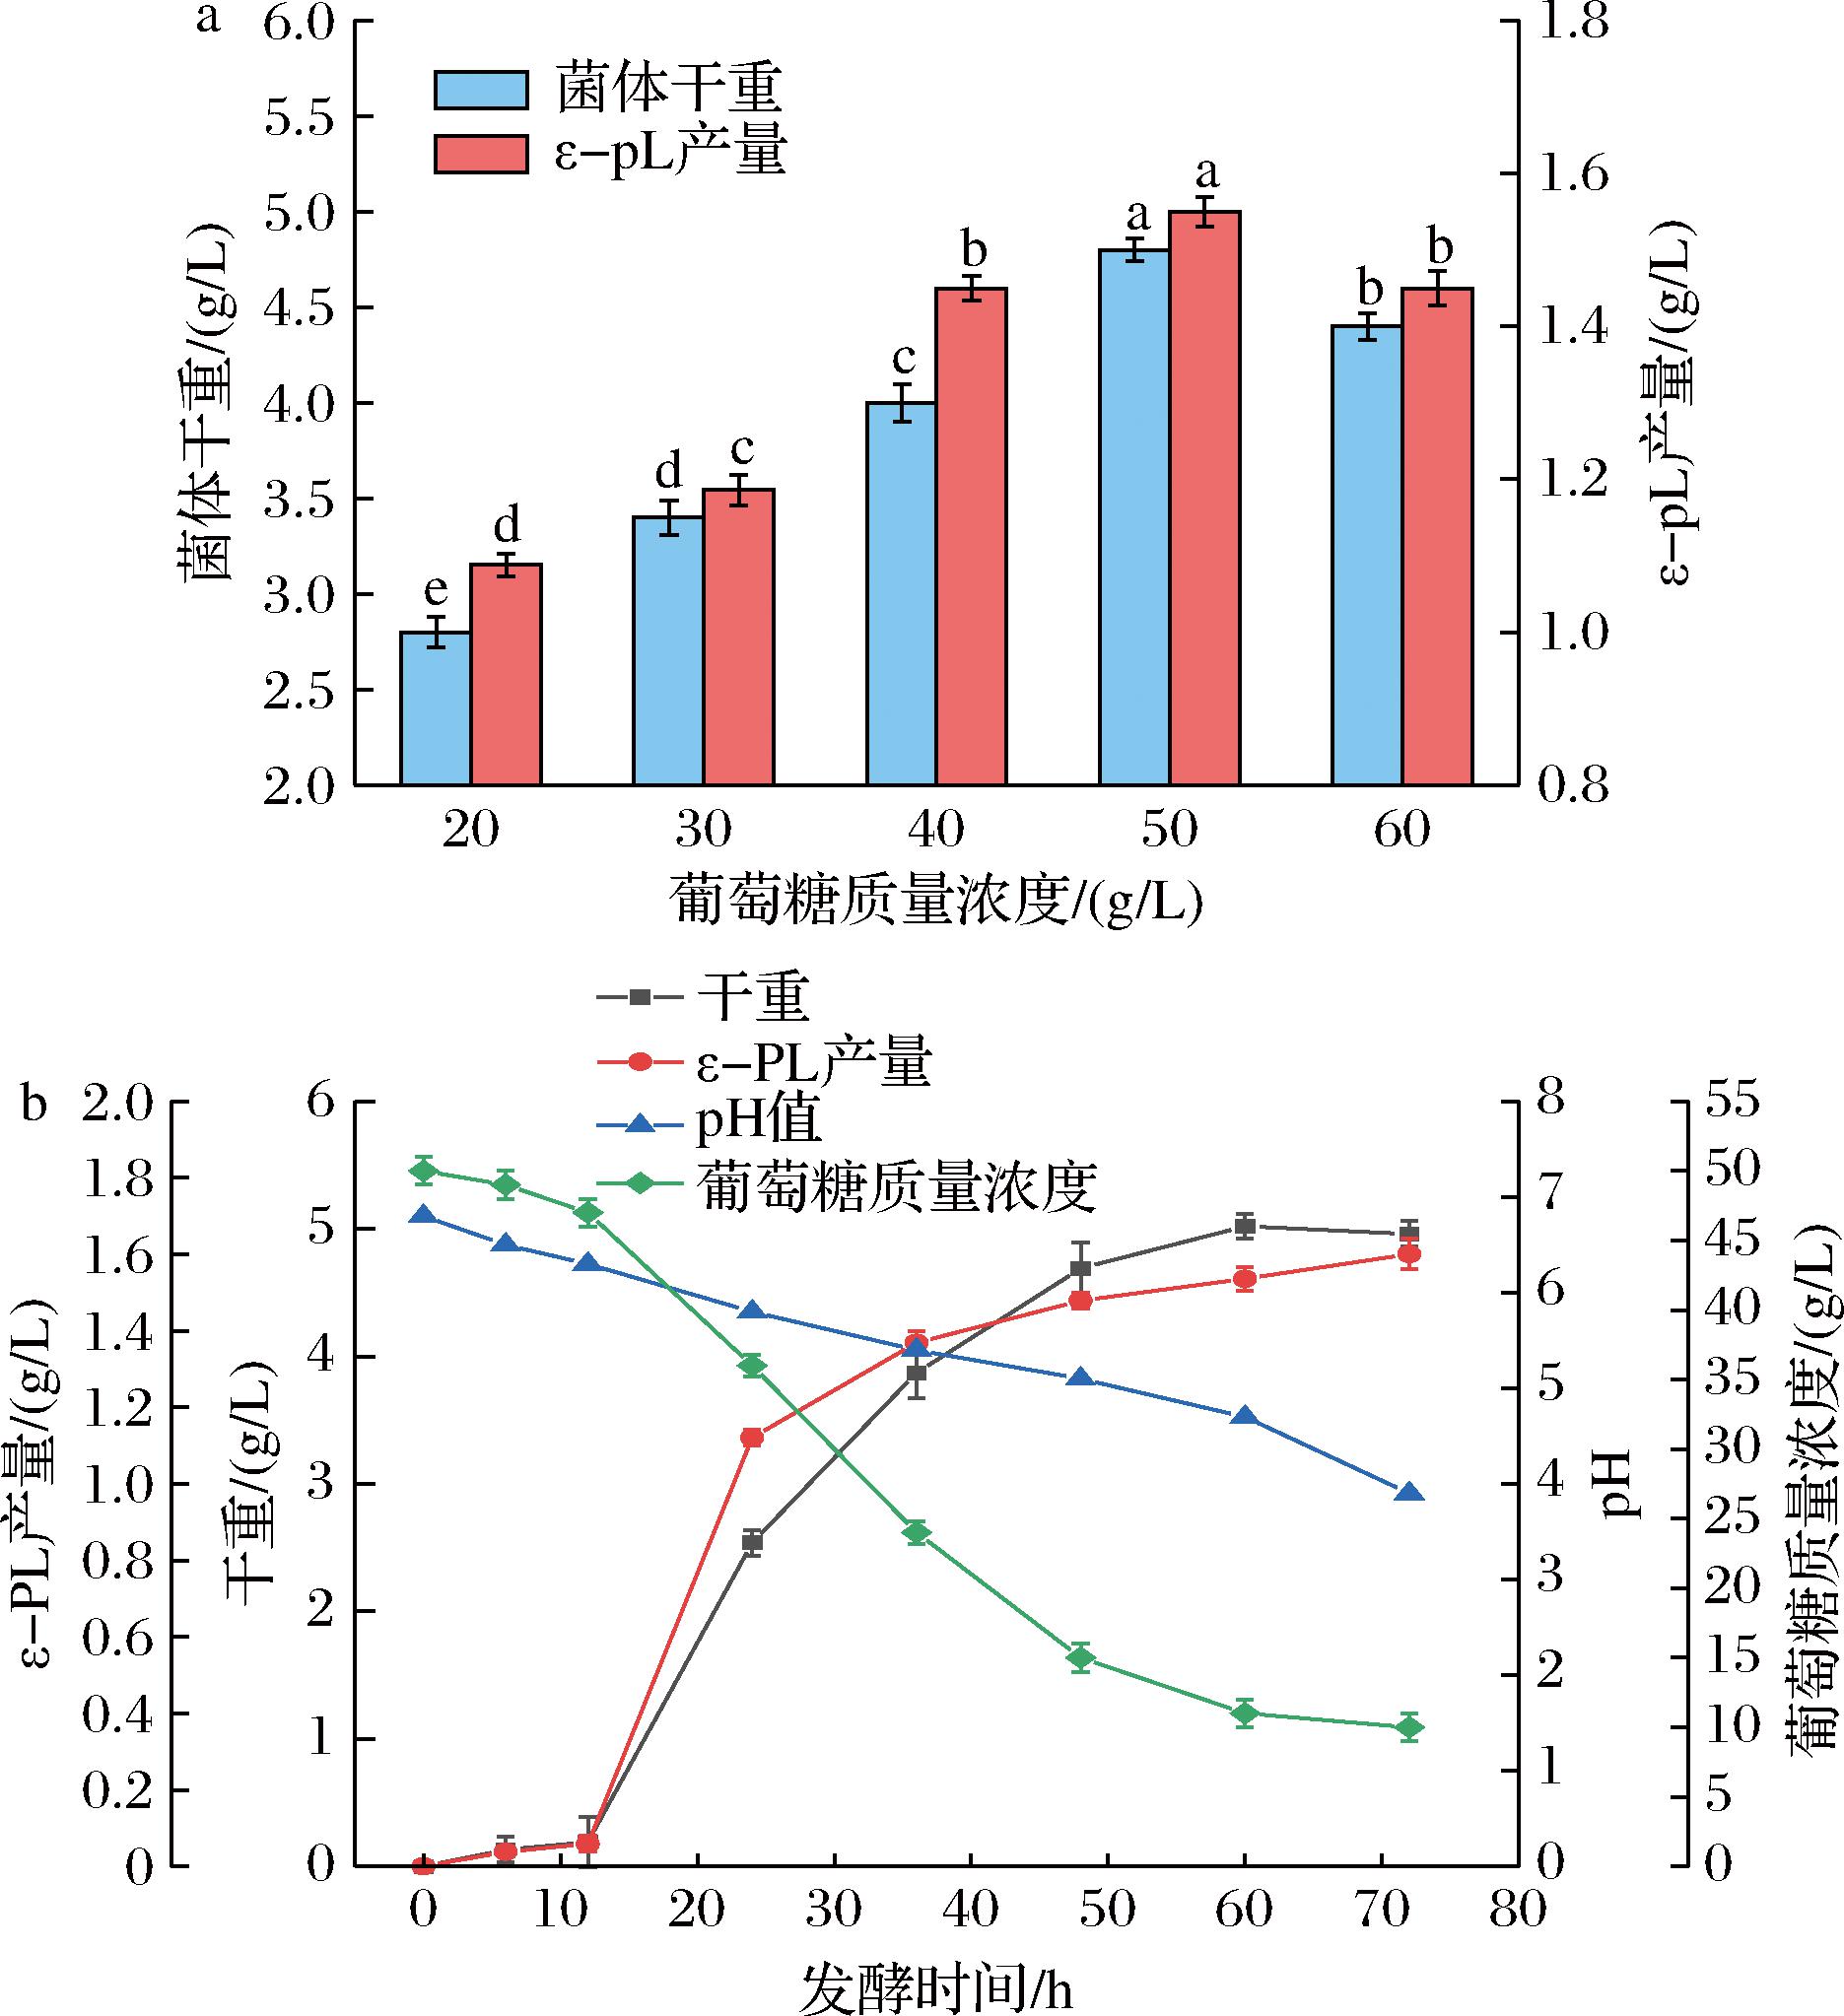
a-葡萄糖初始质量浓度对ε-PL产量的影响;b-SPRH摇瓶发酵
图1 S.albulus ZY1以SPRH为碳源生产ε-PL
Fig.1 Production of ε-PL by S.albulus ZY1 using SPRH as the carbon source
注:不同小写字母代表同一组内有显著性差异(P<0.05)(下同)。
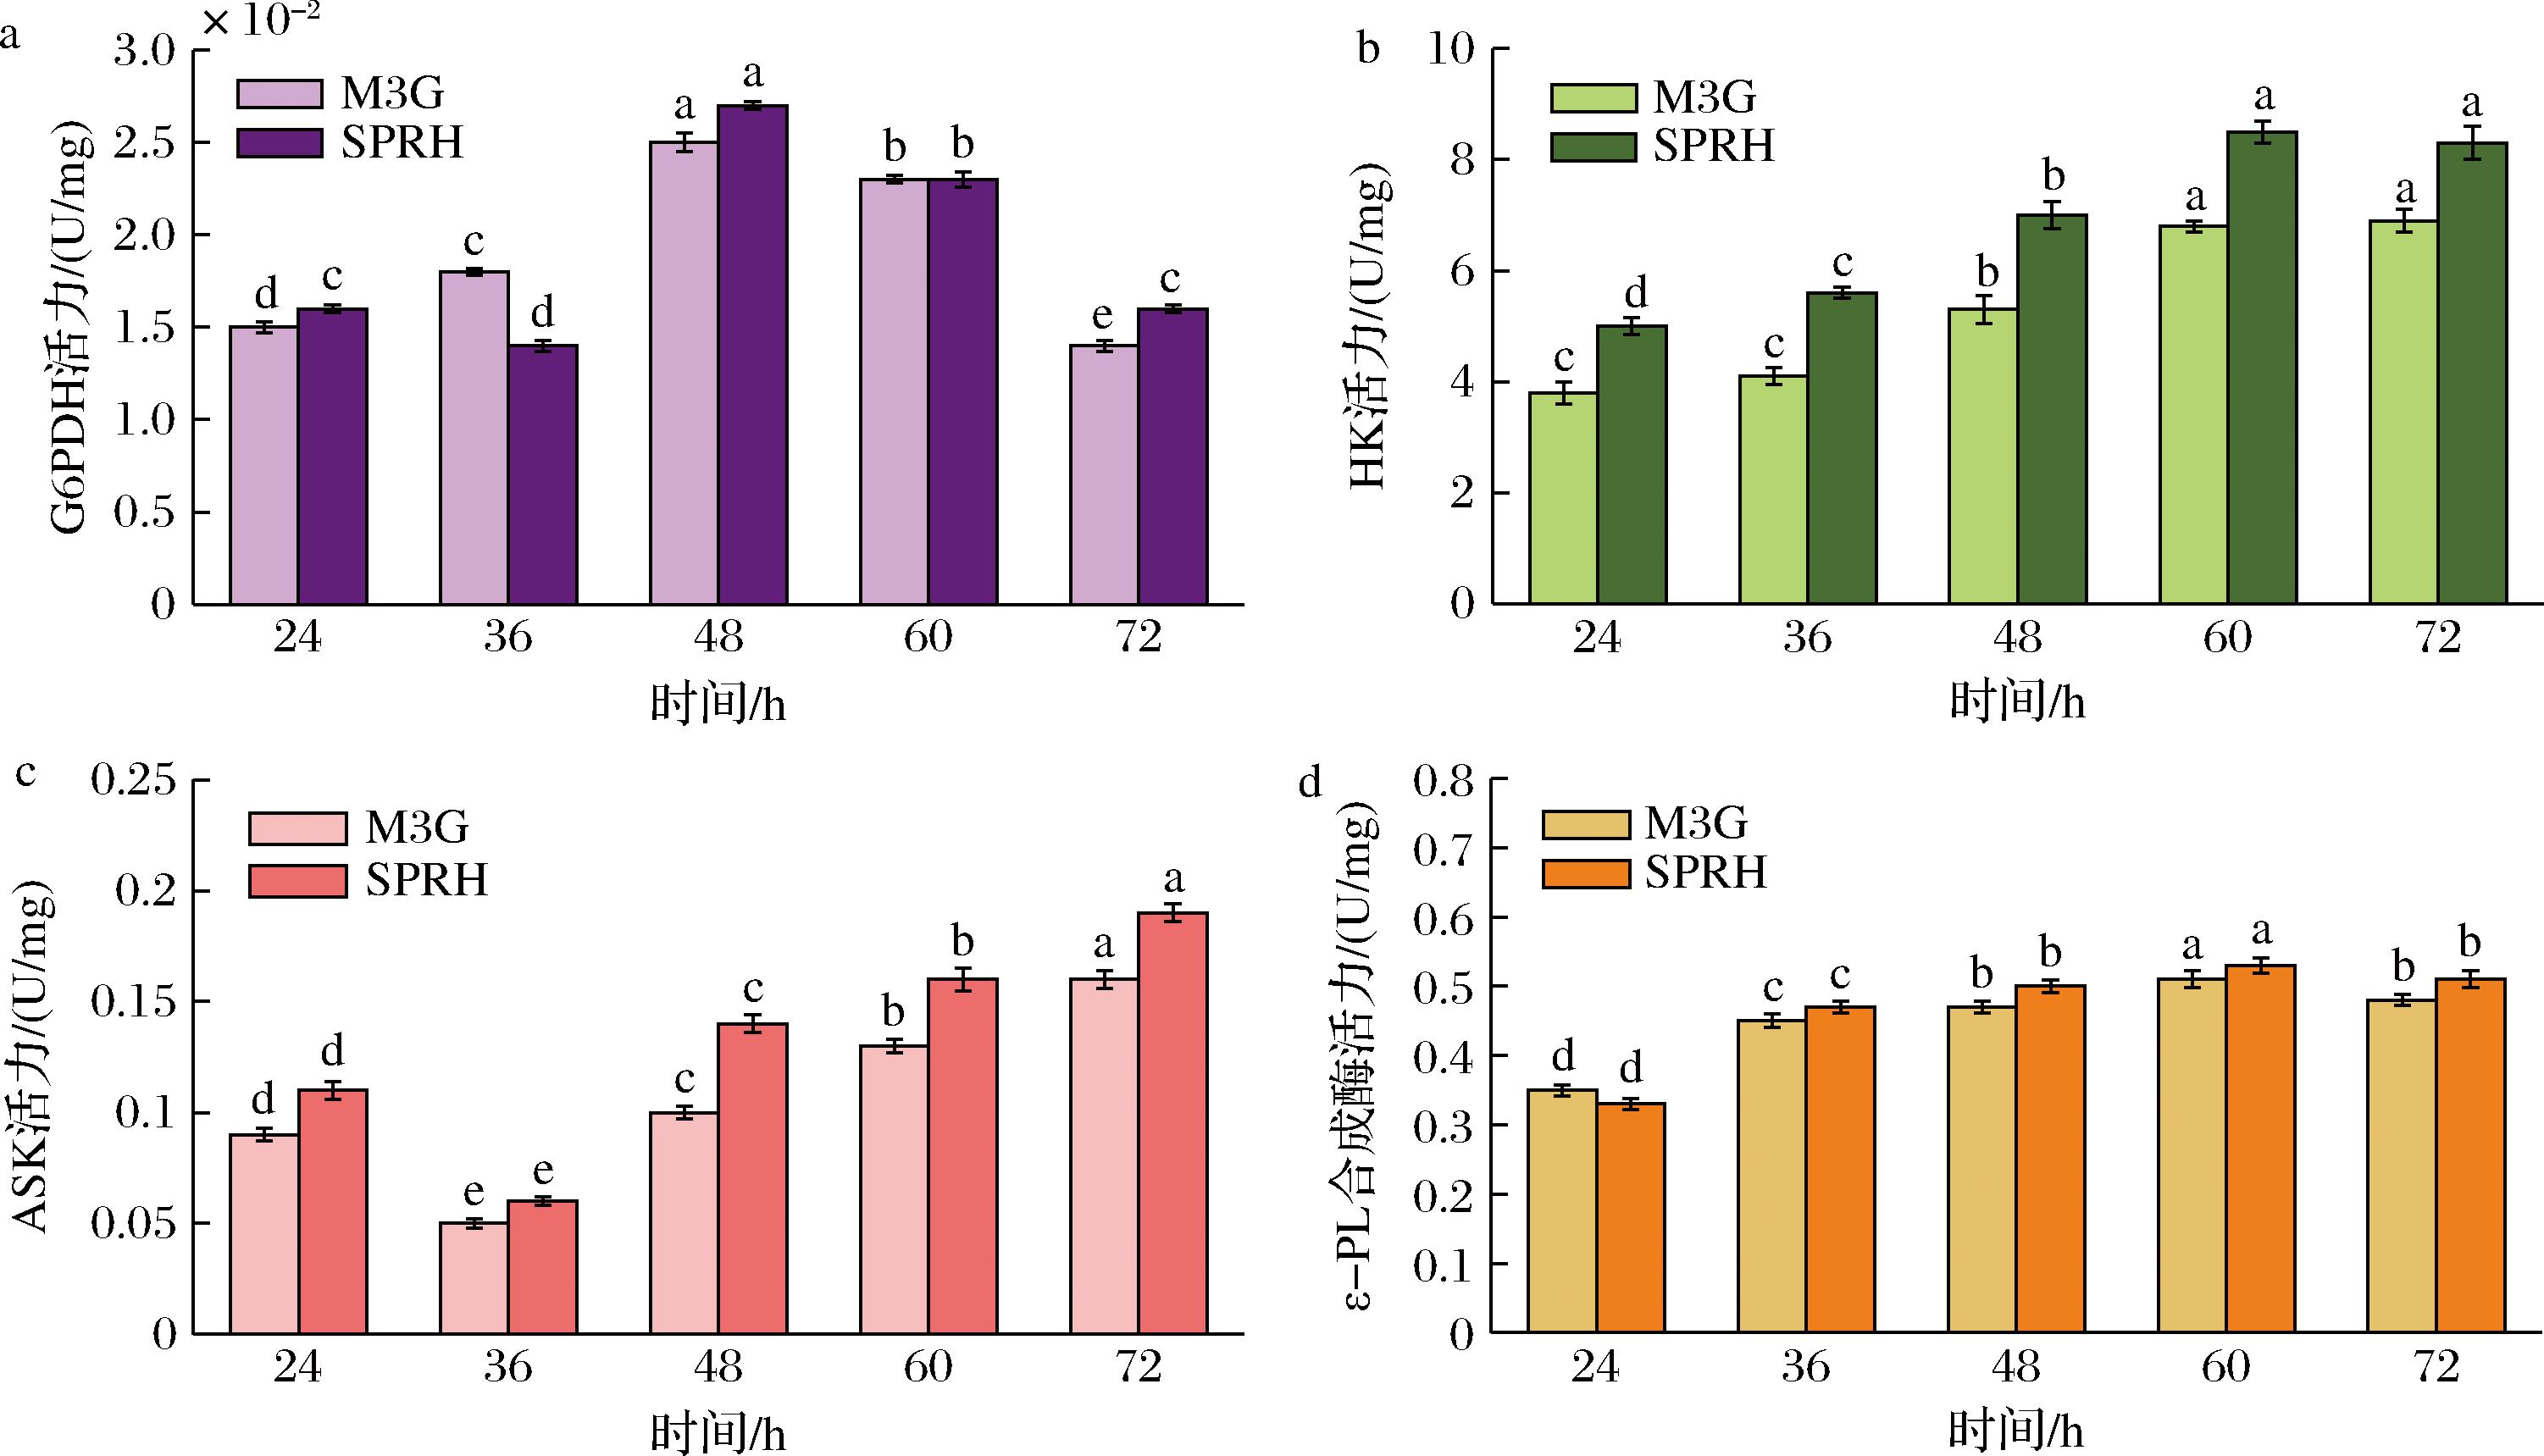
a-G6PDH;b-HK;c-ASK;d-ε-PL合成酶
图2 S.albulus ZY1在M3G与SPRH生产ε-PL过程中4种酶活性变化
Fig.2 Changes in the activities of four enzymes during ε-PL production by S.albulus ZY1 in M3G and SPRH media
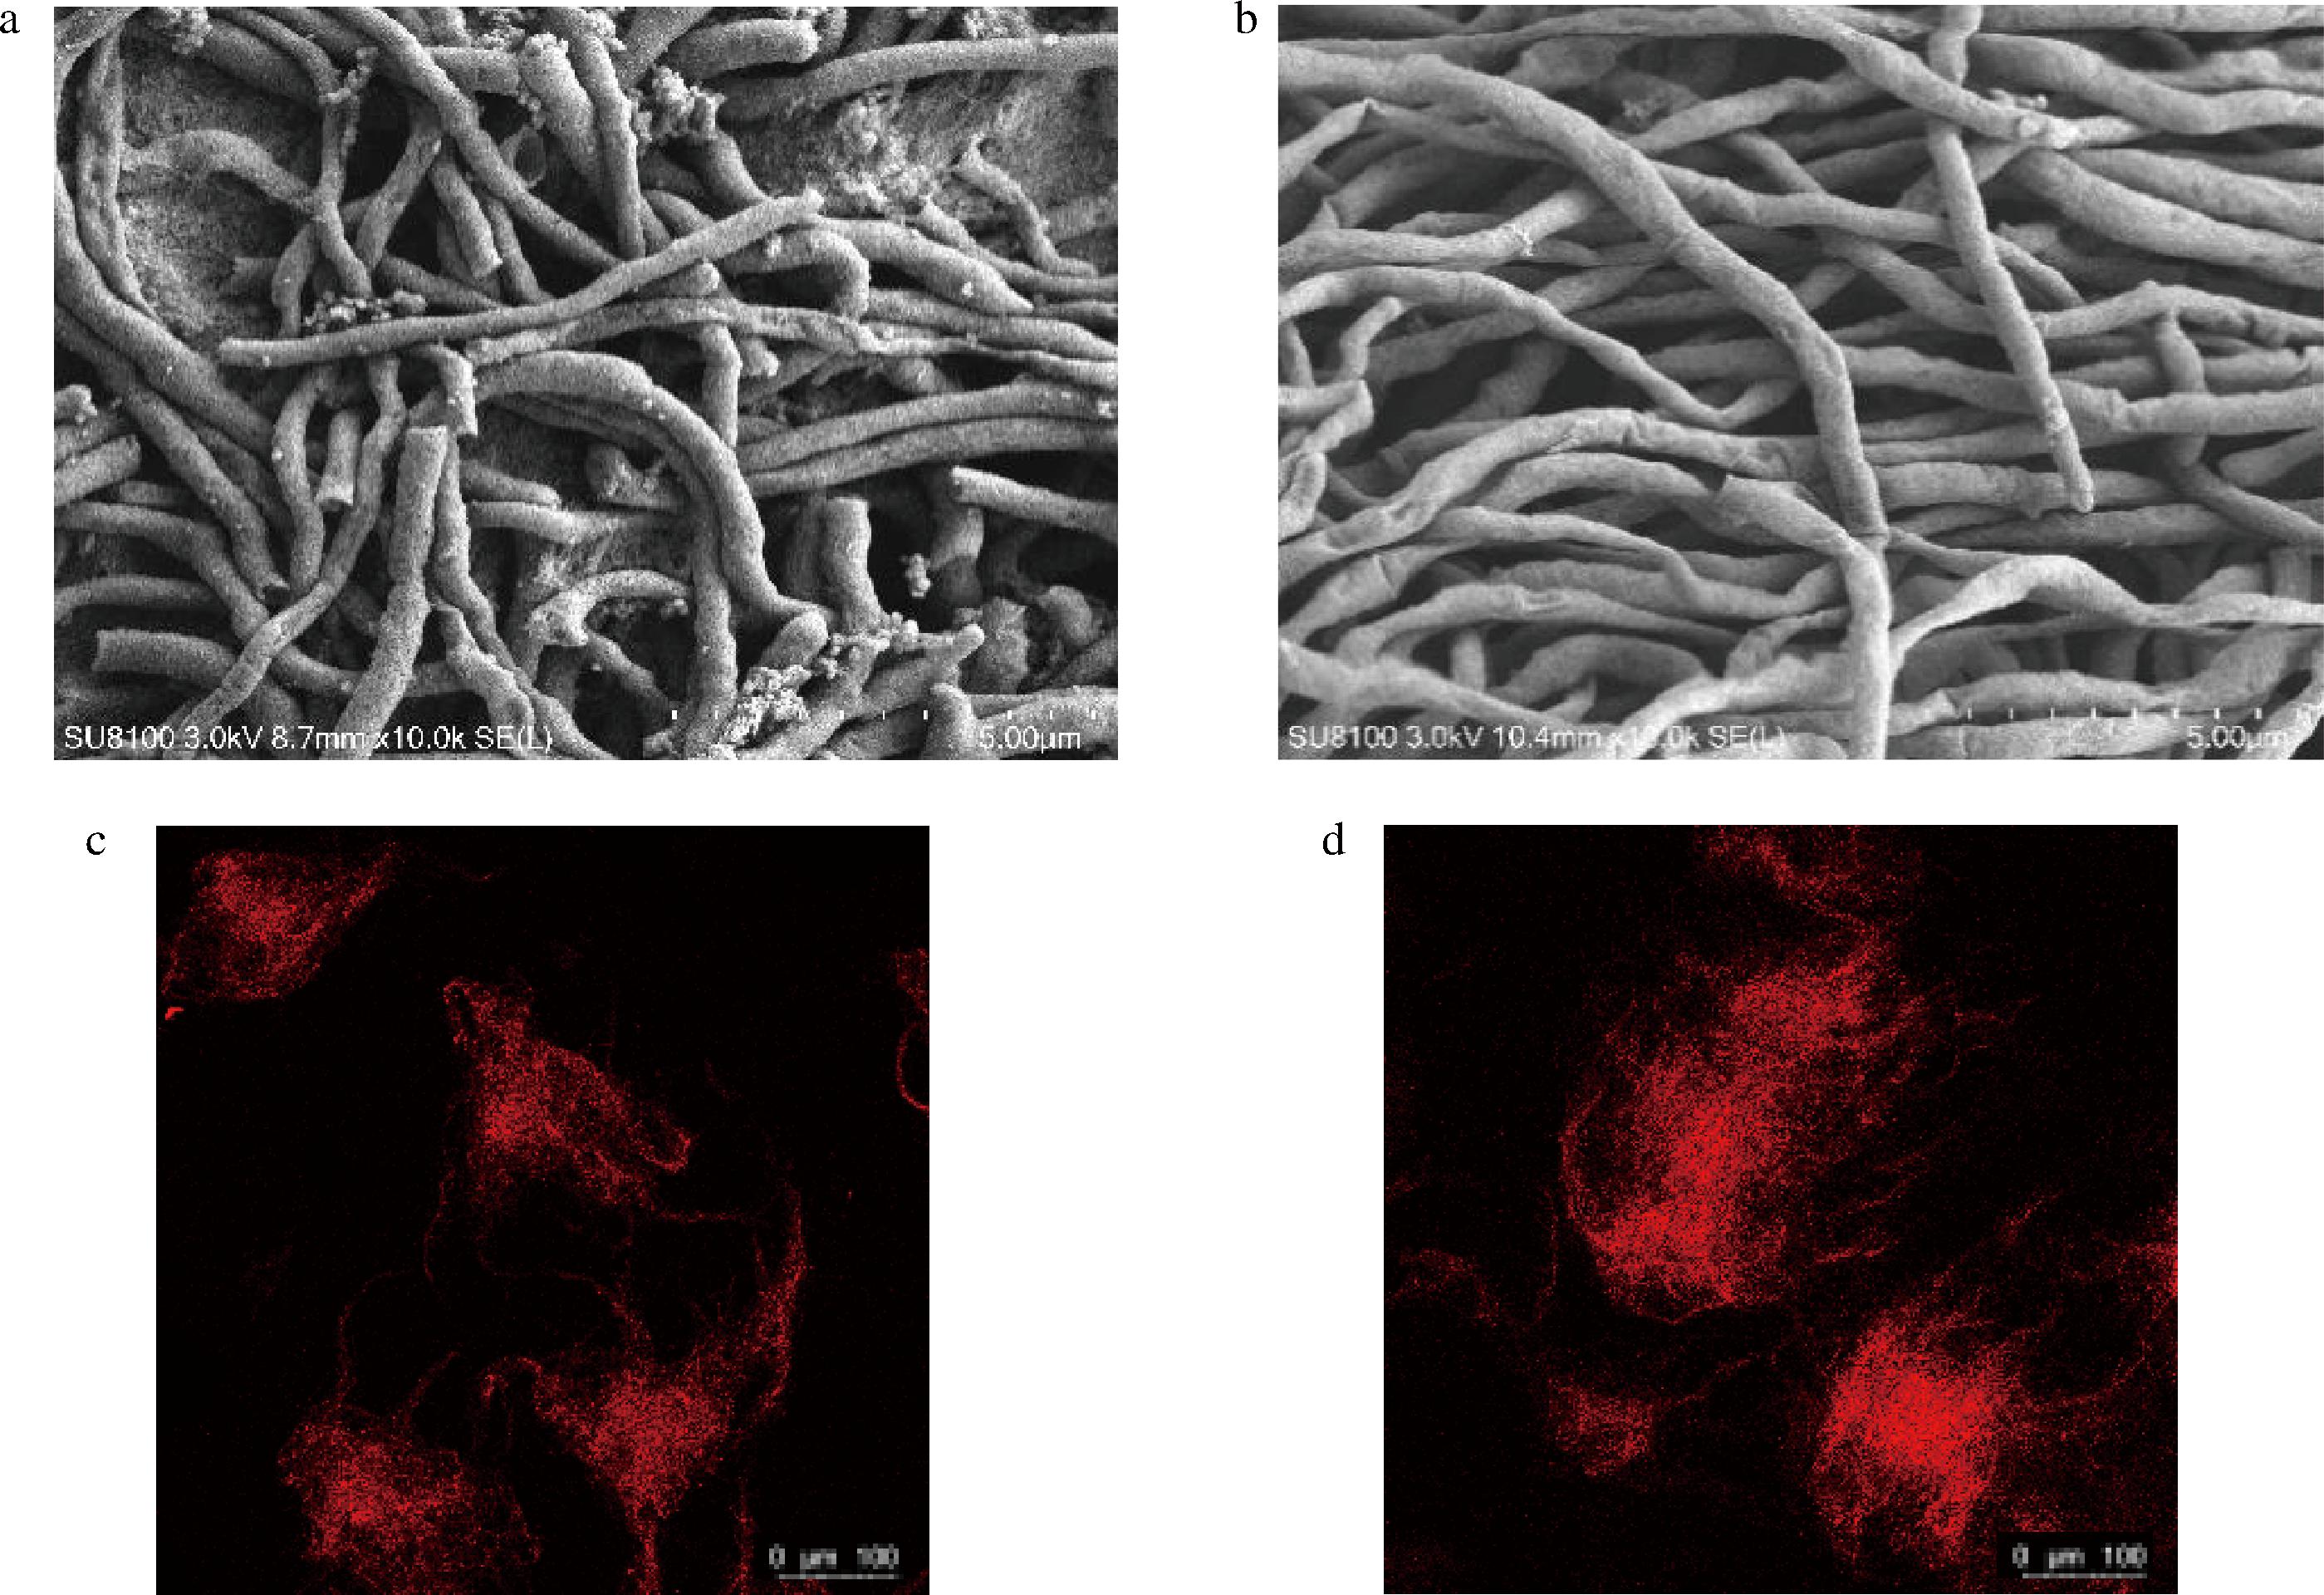
a-M3G-菌丝形态;b-SPRH-菌丝形态;c-M3G-呼吸强度;d-SPRH-呼吸强度
图3 S.albulus ZY1在 M3G和SPRH培养基中的菌丝扫描电镜及激光共聚焦显微镜观察结果
Fig.3 Observation of mycelia of S.albulus ZY1 in M3G and SPRH media using scanning electron microscopy and confocal laser scanning microscopy
2.2 水解液对酶活力的影响
如图2所示,SPRH组G6PDH的酶活力在发酵48 h达峰值,较M3G组高14.3%,这一结果表明,SPRH可能通过上调该酶活力增强戊糖磷酸途径通量,进而为菌体生长提供更充足的NADPH[22];SPRH组的HK活力在整个发酵过程中均高于M3G组,48 h时提高8.7%,提升了葡萄糖代谢通量;而ASK活力在36 h时降至最低后回升,在72 h时SPRH组较M3G组提高了5.2%,说明SPRH可能有利于L-Lys的前体合成;ε-PL合成酶活力在发酵前期低于M3G组,但于36 h后反超,在48 h时提高6.4%,直接促进了ε-PL合成。上述结果表明,SPRH可通过提升关键酶活力,优化代谢流分布,从而促进ε-PL生产。
2.3 菌丝形态与细胞呼吸活性
SEM观察结果显示(图3-a、图3-b),发酵48 h时,SPRH组和M3G组的菌丝结构均较完整,但SPRH组的菌丝更粗壮、断裂更少,菌丝更完整。这可能是因为SPRH中除葡萄糖外,还含有少量氨基酸、维生素等营养成分,有利于菌丝的生长[24]。通过测定荧光强度分析不同发酵时间的细胞呼吸强度,结果显示发酵48 h(中期)时,SPRH组菌丝的红色荧光强度高于M3G组(图3-c,图3-d),表明此时SPRH组的呼吸活性更强。激光共聚焦显微镜图像显示,SPRH组的菌丝易聚集形成舒展状态的菌丝团,呼吸活性显著提升,这与SPRH组菌体干重更高的结果一致(图1-b)。推测SPRH有助于维持菌株正常的生理功能,从而促进菌体生长和代谢活性[25]。
2.4 转录组分析
为进一步阐明SPRH对ε-PL生产的影响,本研究对发酵48 h的SPRH组与对照组(M3G组)进行转录组对比分析。结果显示,2组共筛选出113个差异表达基因,其中37个基因显著上调、76个基因显著下调(|log2FoldChange|>1,padj<0.05)。GO富集分析表明(图4-a),前30个显著差异表达基因主要富集于细胞内组分与细胞质,同时在翻译、结构分子活性、核糖体及细胞内无膜细胞器等通路中也存在差异表达;从功能分类来看,生物过程中的差异基因多与细胞过程、代谢过程相关,细胞组分中的差异基因集中于细胞膜、细胞及细胞部分,分子功能中的差异基因则主要参与结合与催化活性。结合基因表达趋势推测,上调基因可能缓解mRNA损伤、肽链合成异常等潜在翻译压力,下调基因则通过减少非必需代谢消耗以节省资源,二者共同作用或有助于维持蛋白质合成稳定性,而蛋白质合成是支撑ε-PL生产的关键生命活动。KEGG富集分析(图4-b)进一步显示,显著差异基因主要富集于转录、碳水化合物代谢及能量代谢等相关通路,这说明SPRH培养基可能对S.albulus的细胞质膜功能与酶催化活性产生调控,进而影响菌株的物质转运与信号传导过程。

a-GO富集分析;b-KEGG通路分类;c-差异表达基因的代谢通路
图4 SPRH和M3G培养基培养菌体样本的转录组分析
Fig.4 Transcriptome analysis of the samples taken from cultures of S.albulus ZY1 in SPRH and M3G medium
注:图b深色柱代表上调差异基因,浅色柱代表下调差异基因。
在具体差异基因中,ffs基因上调幅度最大(9.37倍),rrf基因(5.21倍)与ssrA基因(4.37倍)紧随其后;其中ffs基因编码的信号识别颗粒sRNA可识别并结合核糖体外暴露的信号肽及内质网膜上的信号识别颗粒受体,rrf与ssrA基因则主要负责回收在截短mRNA上停滞的核糖体,三者功能均集中于蛋白质合成的关键步骤(信号肽识别、靶向转运、停滞核糖体回收)。下调最显著的purS基因编码甲酰甘氨酰胺核苷酸合成酶,主要参与嘌呤核苷酸从头合成途径。此外,KEGG代谢通路分析显示,SPRH组中与ε-PL合成相关的代谢通路基因转录水平整体高于M3G组,其中戊糖磷酸途径上调最为显著。该途径是与糖酵解途径相互关联且功能互补的关键代谢通路,不仅可产生大量的NADPH以满足细胞合成代谢的还原力需求,而且SPRH组中葡萄糖-6-磷酸向核酮糖-5-磷酸的转化,以及核酮糖-5-磷酸与木酮糖-5-磷酸、核糖与核糖-5-磷酸等代谢中间产物的互变均更活跃,这与“戊糖磷酸途径活性上调可增强细胞生长维持能力”的研究结论一致,可以推测其或通过提升NADPH供应与优化碳流向赖氨酸前体的分配,为ε-PL合成创造有利代谢环境,同时支撑菌体整体代谢活性提升。
2.5 5 L 发酵罐分批及补料分批发酵
为进一步验证SPRH作为碳源生产ε-PL的可行性,本研究在5 L发酵罐中分别开展分批发酵与补料分批发酵实验(图5)。
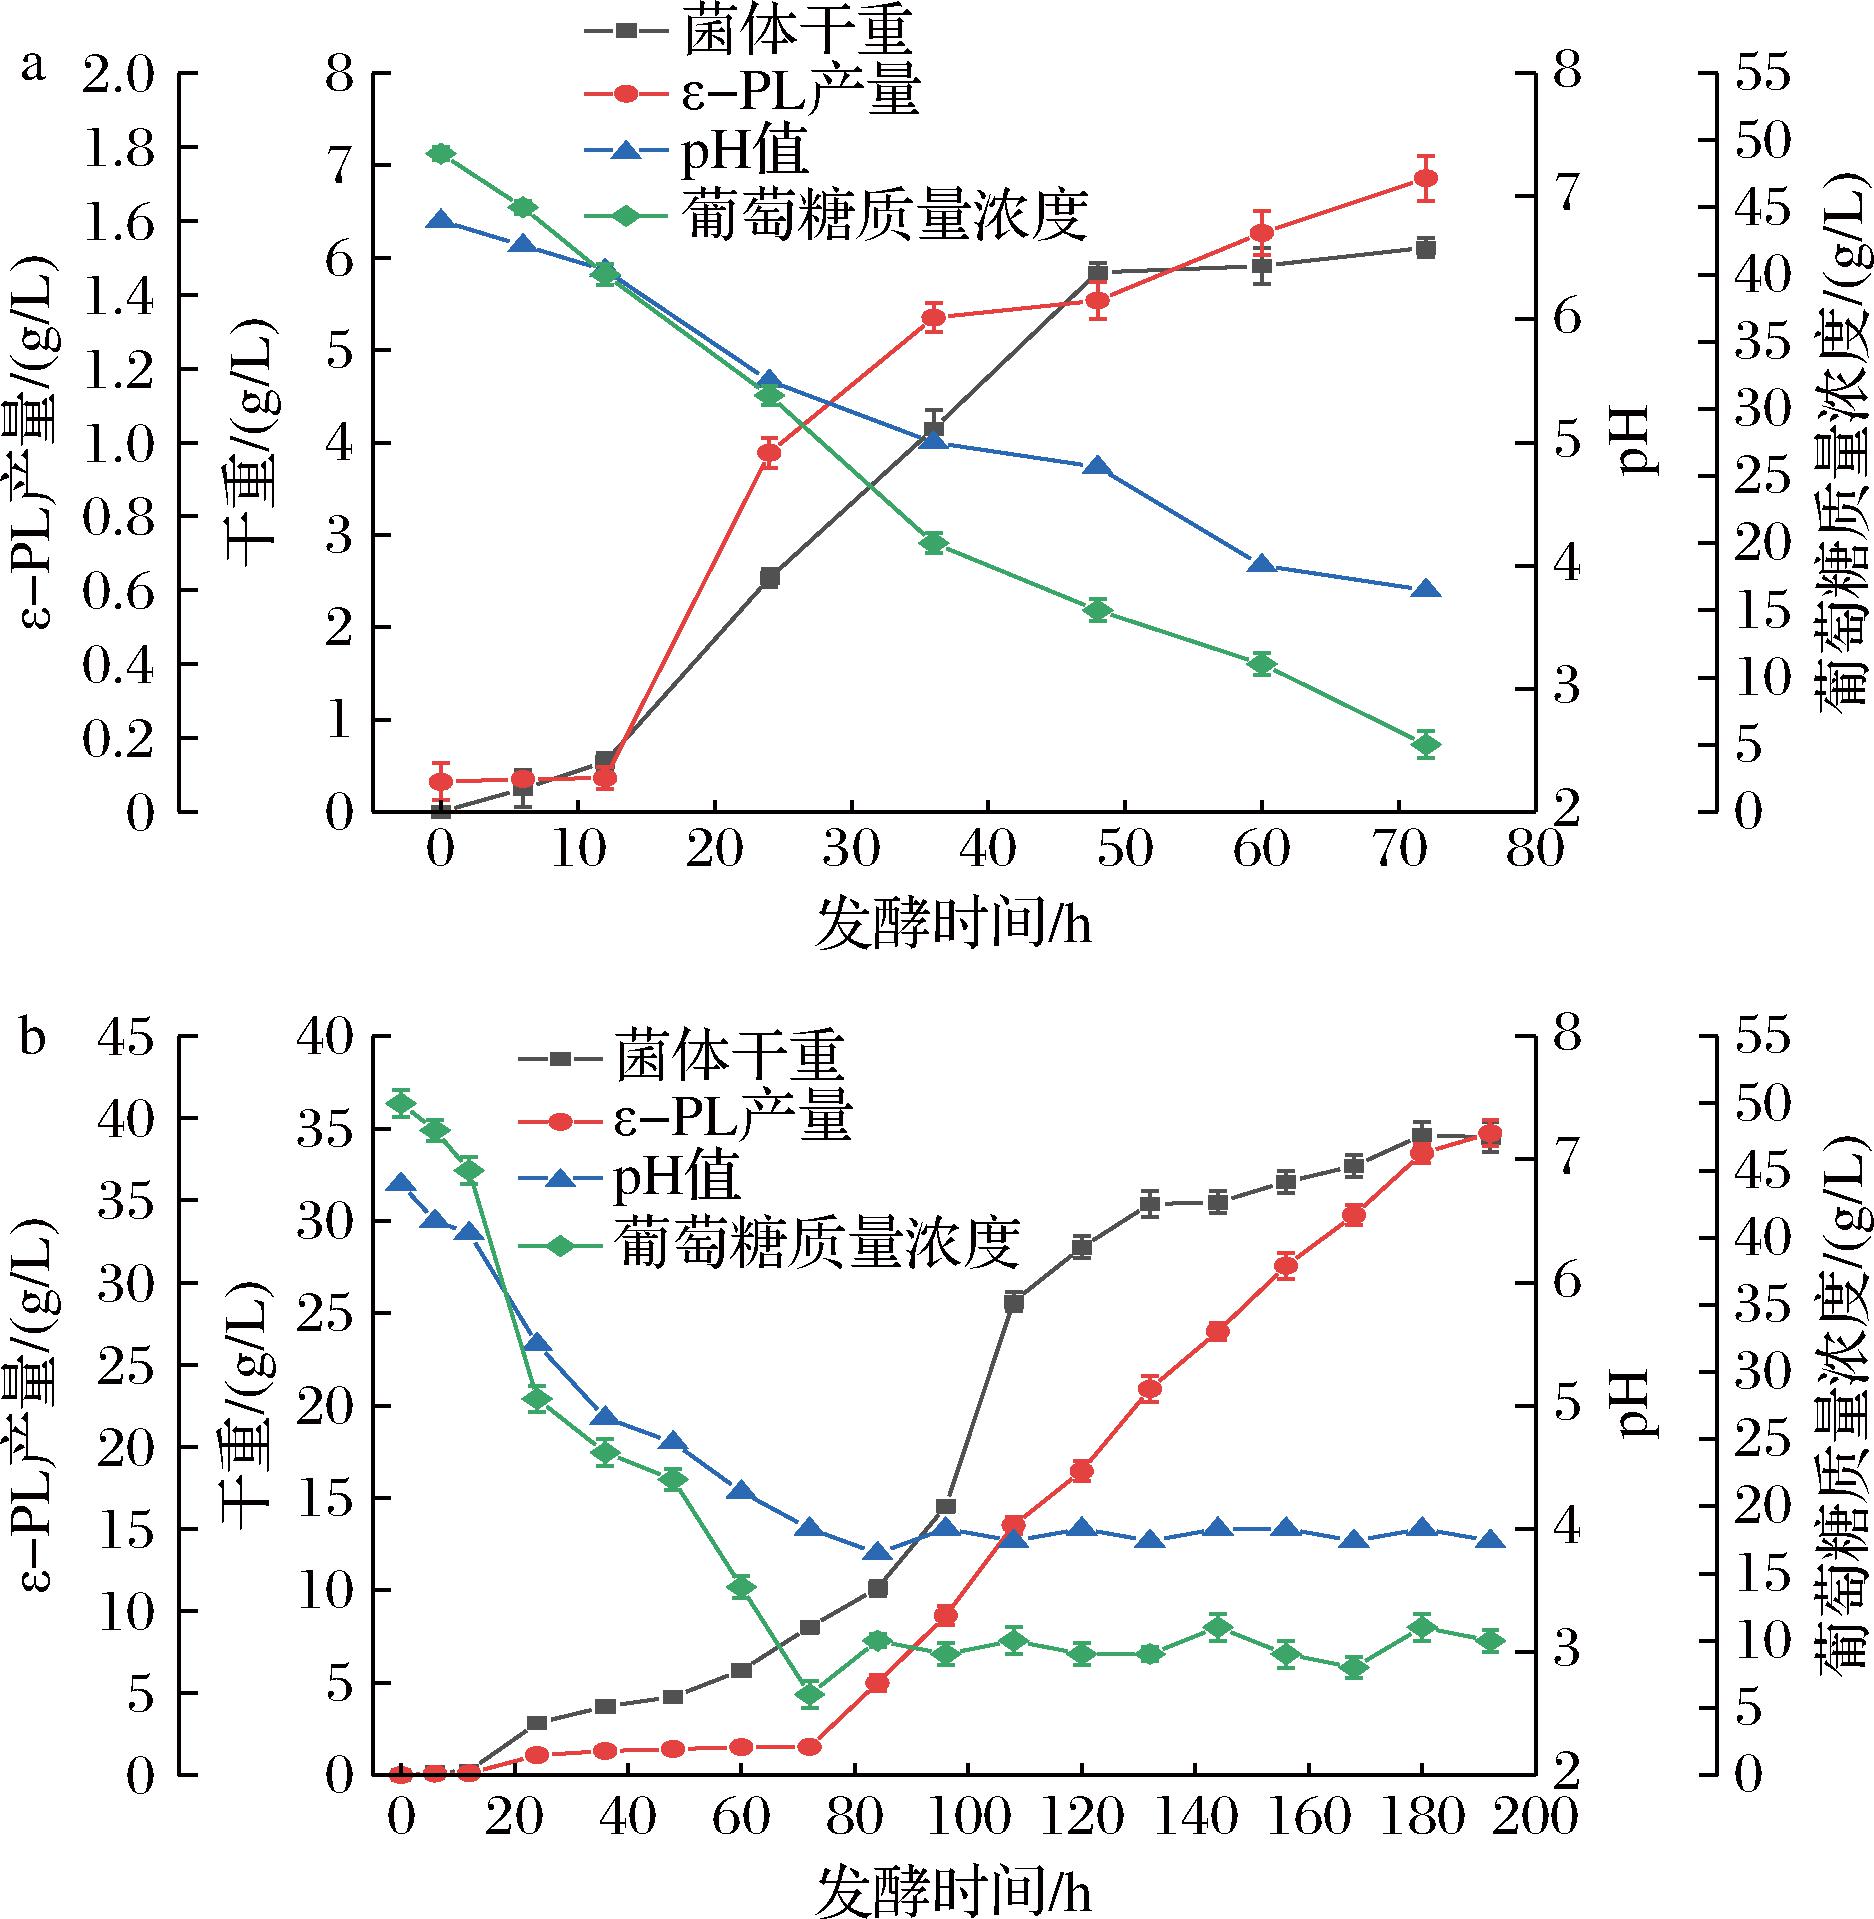
a-分批发酵;b-补料分批发酵
图5 S.albulus ZY1在5 L发酵罐中以甘薯渣为碳源进行分批发酵与补料分批发酵
Fig.5 Profiles of batch and fed-batch fermentations of S.albulus ZY1 using SPRH in a 5-L bioreactor
在分批发酵过程中(图5-a),SPRH组表现出更优的生长与产酸特性(附图3)。发酵前期(0~30 h)菌体干重呈稳步上升趋势,葡萄糖消耗速率显著加快;ε-PL产量自12 h开始提升,进入发酵中期后增长速率明显加快。与之相比,M3G组葡萄糖消耗速率较慢,且20 h 时,ε-PL产量仍维持在较低水平(附图3)。发酵至72 h结束时,SPRH组ε-PL产量与菌体干重分别达到1.72 g/L、6.11 g/L,此时发酵液pH值降至3.8;而M3G组pH值降至3.6,结合既往研究可知[26],SPRH组适宜的酸碱水平更利于ε-PL积累,上述结果表明SPRH可有效促进S.albulus生长及ε-PL合成。
为进一步提升ε-PL产量,后续开展补料分批发酵实验(图5-b)。当发酵液中葡萄糖质量浓度降至10 g/L时,持续补加SPRH浓缩液以维持体系内葡萄糖质量浓度稳定在10 g/L左右。发酵进程显示,180 h时菌体干重达到最大值34.65 g/L;至192 h时,ε-PL产量达到峰值39.09 g/L,对应的生产效率为4.89 g/(L·d)。该结果进一步证实,在5 L发酵罐规模下,以SPRH为碳源生产ε-PL具有良好的可行性与应用潜力。
3 结论与讨论
近些年来,利用廉价农业副产物生产ε-PL的相关研究陆续开展:甘蔗糖蜜作为制糖工业的副产物,也已应用于ε-PL生产,S.albulus PD-1以其为碳源时产量为20.6 g/L[11]。以木薯蔗渣水解液为碳源的摇瓶发酵中,ε-PL产量达1.30 g/L[12]。本研究首次将淀粉加工副产物-甘薯渣应用于ε-PL生产,该原料成本仅为葡萄糖的20%以下,且利用率不足30%,不仅有效降低了ε-PL发酵的碳源成本,更实现了农业废弃物的高值化资源化利用。
本研究系统探究了以SPRH为碳源的S.albulus产ε-PL工艺,结果表明:当SPRH中初始葡萄糖质量浓度为50 g/L时,ε-PL产量达到1.55 g/L,较对照组提高9.15%;扫描电子显微镜观察显示,SPRH组菌丝更粗壮、断裂更少,细胞呼吸活性显著提升;SPRH发酵过程中,ε-PL合成相关的4种关键酶活性均有不同程度提高;在5 L发酵罐的补料分批发酵中,ε-PL产量达到39.09 g/L,生产效率为4.89 g/(L·d)。本研究为利用低成本甘薯渣生产ε-PL提供了实践参考。
[1] 刘宇翔. 基于L-赖氨酸流加的ε-聚赖氨酸发酵工艺建立及高产原因解析[D].无锡, 江南大学, 2022.Liu Y X.Process development and high-yield mechanism analysis for ε-poly-L-lysine production based on L-lysine feeding strategy[D].Wuxi:Jiangnan University, 2022.
[2] 赵晓蕊, 李荣辉, 蔡小雨, 等.ε-聚赖氨酸的抑菌机理及其在肉制品复合保鲜中应用研究进展[J].食品研究与开发, 2023, 44(2):218-224.Zhao X R, Li R H, Cai X Y, et al.Research progress inε-polylysine:Antibacterial mechanism and application in composite coating for preservation of meat products[J].Food Research and Development, 2023, 44(2):218-224.
[3] Li B Y, Wu C Q, Bai S M, et al.Enhancement of ε-poly-L-lysine production by Streptomyces albulus FQF-24 with feeding strategies using cassava starch as carbon source[J].Bioprocess and Biosystems Engineering, 2024, 47(12):1973-1984.
[4] Yu Y Y, Xia L, Wen J P.Fermentation optimization and metabolomic analysis of ε-polylysine production in Streptomyces albulus[J].Biochemical Engineering Journal, 2025, 220:109758.
[5] Ren X D, Chen X S, Zeng X, et al.Acidic pH shock induced overproduction of ε-poly-L-lysine in fed-batch fermentation by Streptomyces sp.M-Z18 from agro-industrial by-products[J].Bioprocess and Biosystems Engineering, 2015, 38(6):1113-1125.
[6] 吴梦萍, 王靓, 张建华, 等.pH-DO组合调控策略提高小白链霉菌ε-聚赖氨酸的生物合成[J].食品与发酵工业, 2023, 49(5):9-17.Wu M P, Wang L, Zhang J H, et al.Enhancing the epsilon-poly-L-lysine biosynthesis of Streptomyces albulus by a pH-DO combined regulation strategy[J].Food and Fermentation Industries, 2023, 49(5):9-17.
[7] 张重阳, 杨昊, 朱道君, 等.过表达L-赖氨酸合成途径关键基因和ε-聚赖氨酸合成酶基因对ε-聚赖氨酸合成的影响[J].食品与发酵工业, 2023, 49(6):1-9.Zhang C Y, Yang H, Zhu D J, et al.Effect of overexpression of key genes in L-lysine biosynthesis pathway and ε-poly-L-lysine synthase gene on ε-poly-L-lysine production[J].Food and Fermentation Industries, 2023, 49(6):1-9.
[8] Wang L, Yang H, Wu M P, et al.Enhanced ε-poly-L-lysine production in Streptomyces albulus through multi-omics-guided metabolic engineering[J].Biomolecules, 2024, 14(7):752.
[9] Zhu D J, Zhang J W, Li S Y, et al.Enhancing ε-poly-L-lysine production in Streptomyces albulus through L-lysine importer engineering[J].Metabolic Engineering, 2025, 92:102-112.
[10] Wang L, Zhang C Y, Zhang J H, et al.Epsilon-poly-L-lysine:Recent advances in biomanufacturing and applications[J].Frontiers in Bioengineering and Biotechnology, 2021, 9:748976.
[11] Xia J, Xu Z X, Xu H, et al.Economical production of poly(ε-L-lysine) and poly (L-diaminopropionic acid) using cane molasses and hydrolysate of Streptomyces cells by Streptomyces albulus PD-1[J].Bioresource Technology, 2014, 164:241-247.
[12] Fu J L, Li C, Ju X, et al.Efficient production of ε-poly-lysine from cassava bagasse hydrolysate used as carbon source by Streptomyces albulus US3-18[J].Bioprocess and Biosystems Engineering, 2022, 45(8):1407-1419.
[13] 丛小甫. 物美价廉的大众保健食品: 甘薯[J]. 中国食品, 2007(7):46-47.Cong X F. Sweet potato-a popular health food with good quality and low price[J]. China Food, 2007(7):46-47.
[14]  E. Citric acid: Properties, microbial production, and applications in industries[J]. Molecules, 2023, 29(1):22.
[15] Ju D, Mu T H, Sun H N. Sweet potato and potato residual flours as potential nutritional and healthy food material[J]. Journal of Integrative Agriculture, 2017, 16(11):2632-2645.
[16] 李燕, 周龙, 王允祥, 等.甘薯渣综合利用研究进展[J].粮食与饲料工业, 2014(4):41-44.Li Y, Zhou L, Wang Y X, et al.Research progress on the comprehensive utilization of sweet potato residue[J].Cereal &Feed Industry, 2014(4):41-44.
[17] Zeng X, Chen X S, Ren X D, et al.Insights into the role of glucose and glycerol as a mixed carbon source in the improvement of ε-poly-L-lysine productivity[J].Applied Biochemistry and Biotechnology, 2014, 173(8):2211-2224.
[18] 曾昕. 小白链霉菌同步代谢葡萄糖和甘油合成ε-聚赖氨酸的生理机制研究[D].无锡:江南大学, 2016.Zeng X.Physiological analysis of the ε-poly-L-lysine biosynthesis in Streptomyces albulus used glucose and glycerol as mixed carbon source[D].Wuxi:Jiangnan University, 2016.
[19] Tang Z Y, Xiao C Y, Zhuang Y P, et al.Improved oxytetracycline production in Streptomyces rimosus M4018 by metabolic engineering of the G6PDH gene in the pentose phosphate pathway[J].Enzyme and Microbial Technology, 2011, 49(1):17-24.
[20] Yamanaka K, Kito N, Imokawa Y, et al.Mechanism of epsilon-poly-L-lysine production and accumulation revealed by identification and analysis of an epsilon-poly-L-lysine-degrading enzyme[J].Applied and Environmental Microbiology, 2010, 76(17):5669-5675.
[21] Wang S Y, Xu J L, Xu S, et al.Efficient enzymatic hydrolysis of sweet potato residue by fed-batch method to prepare high-concentration glucose[J].Bioprocess and Biosystems Engineering, 2025, 48(5):829-839.
[22] Lian C C, Zhang M, Mao J Q, et al.Transcriptomic and metabolomic analyses for providing insights into the influence of polylysine synthetase on the metabolism of Streptomyces albulus[J].Microbial Cell Factories, 2022, 21(1):224.
[23] Pagana I, Morawicki R, Hager T J.Lactic acid production using waste generated from sweet potato processing[J].International Journal of Food Science &Technology, 2014, 49(2):641-649.
[24] Li S, Chen X S, Dong C L, et al. Combining genome shuffling and interspecific hybridization among Streptomyces improved ε-poly-L-lysine production[J]. Applied Biochemistry and Biotechnology, 2013, 169(1):338-350.
[25] Ardha A, Julia C, Joerg F.A review of starch, a unique biopolymer-Structure, metabolism and in planta modifications[J].Plant Science, 2022, 318:111223.
[26] Kahar P, Iwata T, Hiraki J, et al.Enhancement of ε-polylysine production by Streptomyces albulus strain 410 using pH control[J].Journal of Bioscience and Bioengineering, 2001, 91(2):190-194.