低聚果糖(fructooligosaccharide,FOS)是一种低聚合度(degree of polymerization,DP)的益生元,通常由3~10个果糖分子组成[1]。其中,DP值为3~6的FOS已被证明具有促进免疫功能,可以选择性地刺激双歧杆菌的生长、改善肠道健康、促进矿物质吸收、降低血脂与胆固醇水平、发挥抗氧化作用等益处[2-4]。因此,FOS广泛用于婴幼儿食品、奶制品、调味品和其他功能性食品中。虽然可用于制备FOS的果聚糖(如菊粉等)广泛分布于天然植物(如菊苣和洋姜)中,但是受限于植物中多糖分离纯化成本较高等原因,工业上主要通过酶法生产FOS。酶法制备主要有2种方式:一是以蔗糖为底物通过具有果糖基转移活性的酶进行酶法合成,二是通过菊粉酶对菊苣来源的菊粉进行水解[5]。除此之外,酶法合成还可利用微生物发酵法直接转化底物生产FOS[6]。相较而言,利用菊粉酶水解菊粉的方法在工业生产中具有更大优势,即菊粉酶能产生不同长度的FOS,并且无副产物生成。该方法反应直接,避免了蔗糖体系下因大量葡萄糖副产物积累而导致的酶活力抑制问题,从而有助于提升转化效率并获得纯度更高的FOS[7]。
菊粉酶(EC 3.2.1.7)催化机制依赖于高度保守的β螺旋桨结构域中的活性中心。该结构通常由12个β螺旋折叠成典型的β夹心构象,为底物结合与水解提供关键空间环境[8]。根据菊粉酶催化作用,可以将菊粉酶分为外切菊粉酶和内切菊粉酶。外切菊粉酶催化去除菊粉分子非还原性末端的果糖残基产生果糖,可用于生产食品行业中的高果糖浆。而内切菊粉酶则随机切割菊粉内部的β-2,1糖苷键,是生产功能性FOS的关键酶。内切菊粉酶广泛存在于微生物界,尤其在真菌和细菌中含量丰富,如黑曲霉(Aspergillus niger)[9]、灰葡萄孢菌(Botrytis cinerea)[10]。
随着基因组学和生物信息学的快速发展,基于序列比对和保守结构域分析的基因组挖掘技术已成为发现新型内切菊粉酶基因的重要手段。目前,已有超过50种内切菊粉酶基因被鉴定,主要来源于芽孢杆菌、曲霉和假单胞菌等属[11]。例如,Gao等[12]从高温土壤中分离出了一株嗜热菌株,所产内切菊粉酶的最适作用温度为70 ℃;Bao等[13]则从斯达氏油酯酵母(Lipomyces starkeyi)中克隆并表征了一种内切菊粉酶,展现出良好的pH稳定性和较高的FOS产率。这些研究大多采用异源表达系统(尤其以大肠杆菌为主)实现酶的高效制备,不仅避免了天然菌株中多种酶共存的复杂性,也显著提高了酶的纯化效率和催化专一性。
然而,现有研究仍存在一定的局限性:一方面,已报道的内切菊粉酶多集中于细菌和常见真菌,对于稀有真菌来源(尤其是不产孢或难培养菌株)的酶资源挖掘仍显不足;另一方面,多数研究侧重于酶的异源表达与基本酶学性质分析,而对酶在温和条件下高效合成FOS的工艺优化仍较为缺乏。此外,尽管大肠杆菌(Escherichia coli)表达系统已广泛应用于内切菊粉酶的制备,但针对某些真菌来源酶的可溶性表达及活性维持仍具挑战。
基于此,本研究通过系统的基因组挖掘,从真菌褶皱裸胞壳(Emericella rugulosa)中鉴定出一条新型内切菊粉酶基因,并利用E.coli表达系统实现其高效可溶性表达。在全面表征其酶学性质的基础上,重点优化了该酶催化菊粉合成高品质FOS的工艺条件,旨在为功能性FOS的规模化生产提供一种具有优良催化特性与工艺适应性的新型酶制剂。
1 材料与方法
1.1 材料与仪器
1.1.1 试验材料
研究所需的引物和基因序列的合成由Genewiz完成;E.coli BL21(DE3)感受态细胞,北京全式金生物技术股份有限公司;菊粉,西格玛奥德里奇(上海)贸易有限公司;高保真DNA聚合酶、One Step Cloning Kit,南京诺唯赞生物科技股份有限公司;Nde Ⅰ、Hind Ⅲ限制性内切酶,纽英伦生物技术(北京)有限公司;Taq DNA聚合酶,苏州近岸蛋白质科技股份有限公司;IPTG、卡那霉素,上海生工生物工程股份有限公司;DNA凝胶回收试剂盒,OMEGA Bio-tek公司;通用型DNA纯化回收试剂盒、质粒小提试剂盒,天根生化科技(北京)有限公司;BCA蛋白浓度测定试剂盒,碧云天生物技术有限公司。
1.1.2 培养基
LB培养基(g/L):蛋白胨10、酵母提取物5、NaCl 10,用于活化重组菌。
TB培养基(g/L):酵母提取物24、蛋白胨12、甘油4、KH2PO4 2.31、K2HPO4 12.54,用于发酵培养。
1.1.3 主要仪器与设备
HVE-50高压灭菌锅,Hirayama公司;SpectraM5酶标仪,美谷分子仪器(上海)有限公司;iBrightCL1500成像系统和ProFlexTMPCR系统、ISC-5000离子色谱柱、Dionex Carbopal PA200色谱柱,赛默飞世尔科技(中国)有限公司;DK-8D电热恒温水槽,上海精宏实验设备有限公司;PowerpacBasic蛋白电泳仪,美国Bio-Rad公司;ZWYR-2102恒温培养振荡器,上海智城分析仪器制造有限公司;SCIENTZ-IID超声波细胞粉碎机,宁波新芝生物科技股份有限公司。
1.2 实验方法
1.2.1 基因组挖掘和基因分析
以来源于Lipomyces starkeyi NRRL Y-11557(NCBI编号:ODQ71402.1)的高性能内切菊粉酶全长氨基酸序列作为参考模板[13]。该模板酶因具有已知最高的比活性之一,且能高效催化生成FOS而被选用。将其提交至NCBI数据库进行blast比对,旨在利用全序列所包含的完整结构域与进化信息进行更全面的同源筛选。初步获得约1 000组同源性在21%~100%的序列。为保证功能相关性的同时聚焦于新型基因的挖掘,设定了30%~80%的序列相似度筛选阈值。其次,再排除先前已表征过的酶的序列。内切菊粉酶核苷酸序列与其他典型内切菊粉酶序列比对使用T-COFFEE (http://www.tcoffee.org)。利用Mega X程序基于连接法构建进化树。
1.2.2 菌株构建及培养
内切菊粉酶的基因序列,委托Genewiz公司合成,利用Nde Ⅰ和Hind Ⅲ双限制性内切酶位点将其定向克隆至pET-28a(+)表达载体中,构建C端含His6标签的重组质粒,转化至E.coli DH5α感受态细胞,经50 μg/mL卡那霉素的LB固体培养基抗性筛选后,委托Genewiz公司完成测序验证,以确保序列正确性。将正确的重组质粒转化到BL21(DE3)感受态细胞中,成功构建的重组BL21(DE3)在37 ℃,200 r/min 的LB培养基中预培养8~12 h。之后,将细胞转移到TB培养基中,在37 ℃,200 r/min下继续培养。当光密度(OD600)值达到0.6~0.8时,在TB培养基中加入0.1 mmol/L的IPTG,在20 ℃,200 r/min下培养20 h。
1.2.3 酶活力测定
以菊粉(或蔗糖)为底物,采用DNS法[14]稍作改进,测定菊粉(或蔗糖)酶活力。反应体系为:50 μL 20 g/L菊粉(或蔗糖)溶液,加入50 μL适当稀释的酶液,于50 ℃反应20 min后,加入0.5 mL DNS试剂,再加入0.9 mL去离子水,于100 ℃加热5 min以终止反应。冷却后,将显色液稀释5倍,于540 nm波长下测定吸光值。菊粉酶活力与蔗糖酶活力的比值以菊粉酶/蔗糖酶(inulinase/sucrase,I/S)表示。
菊粉酶活力或蔗糖酶活力的定义为:最适温度和pH值下,每分钟水解菊粉或蔗糖生成1 μmol还原糖所需的酶量(mL)为1个酶活力单位(U)。
菊粉酶比酶活力的定义为:最适温度和pH值下,单位重量(mg)菊粉酶所具有的酶活力单位数(U)。
1.2.4 动力学参数
测量内切菊粉酶在不同质量浓度(0.5~20 mg/mL)底物下的反应速率,并通过拟合Michaelis-Menten方程来计算Km和Vmax值。Vmax除以对应的蛋白摩尔数即为转化数Kcat值。
1.2.5 内切菊粉酶的表达与纯化
在TB培养基中培养20 h后,在9 000 r/min,4 ℃离心10 min收集重组菌细胞,沉淀细胞重悬于50 mmol/L磷酸钠缓冲液(pH 5.5)中。用超声波(超声3 s,间隔7 s)在冰上共20 min破坏细胞,并在9 000 r/min,4 ℃下离心10 min。收集可溶性部分,采用SDS-PAGE分析内切菊粉酶的表达水平。酶的纯化采用Ni-NTA亲和柱层析梯度洗脱法。在缓冲液(50 mmol/L PBS,pH 7.4)中,用咪唑线性梯度从0~400 mmol/L洗脱。目的蛋白在100 mmol/L咪唑时被洗脱并经过PD-10脱盐柱进行脱盐[13]。
1.2.6 内切菊粉酶的生化特性
为了确定内切菊粉酶的最适温度,以30~80 ℃作为反应温度测定纯化后内切菊粉酶的酶活力,以酶活力最高的记为100%,其余酶活力与之相比计算相对酶活力。为了确定内切菊粉酶的热稳定性,将纯化后的酶液分别置于以上温度下孵育1 h后在最适温度下测定其酶活力,以未进行孵育的酶活力记为100%,通过计算相对酶活力考察热稳定性。另外,为评估重组内切菊粉酶ER-INUI在不同时间(0.5~5 h)反应条件下的稳定性,将适量纯化酶液分别置于35~60 ℃的恒温水浴中孵育不同时间,随后,在标准条件下测定各样品的残余酶活性。
以0.5个pH单位为一个间隔,配制pH 2.5~12.0的缓冲液体系。不同pH的缓冲液分别使用NaH2PO4-C6H8O7(50 mmol/L,pH 2.5~5.0),Na2HPO4-NaH2PO4(50 mmol/L,pH 6.0~9.0)和Na2HPO4-NaOH(50 mmol/L,pH 10.0~12.0)配制。用上述缓冲液分别配制20 g/L的菊粉溶液从而获得不同pH的底物溶液。为了确定内切菊粉酶的最适pH值,在最适温度下,测定各pH值下纯化后的内切菊粉酶的酶活力,最高酶活力记为100%,计算相对酶活力。为了确定内切菊粉酶的pH稳定性,将酶液贮存在不同pH(2.5~12.0)的缓冲液中于4 ℃孵育24 h后在最适温度和最适pH值下测定各样品的残余酶活性[11]。
将纯化后的内切菊粉酶分别与金属缓冲液混合后,在4 ℃孵育1 h,再在最适温度和最适pH值条件下测定纯化后的内切菊粉酶的酶活力,记未加金属离子的酶活力为100%,计算相对酶活性,每个实验组设置3个重复[15]。
1.2.7 酶解产物的薄层层析(thin layer chromatography,TLC)定性分析
在1 mL pH 5.5的缓冲液配制20 g/L的菊粉溶液中加入1 mL酶液在50 ℃反应1 h,然后在100 ℃加热10 min以终止反应。取酶反应产物1 μL,点样于薄板,V(乙腈)∶V(乙酸乙酯)∶V(异丙醇)∶V(水)=4∶1∶2.5∶1作展开剂,置于层析缸上行展开。α-萘酚∶甲醇∶浓硫酸=0.3∶95∶5(g∶mL∶mL)为显色剂,喷雾于薄板,置于烘箱(100 ℃,10 min)显色[16]。
1.2.8 产物优化
为确定内切菊粉酶生产FOS的工艺条件,本研究考察并优化了包括菊粉浓度、酶用量、反应时间与温度在内的酶解参数。首先,在pH 5.5、55 ℃条件下,将不同质量浓度(10~60 g/L)的菊粉底物缓冲液与固定酶用量为30 U/g的酶液反应8 h,考察底物浓度对FOS产量的影响。在此基础上,选定最适底物浓度,进一步在相同pH值与温度下,研究在不同酶用量(10~60 U/g)下反应8 h对FOS产量的影响。随后,在优化的底物浓度与酶用量条件下,于pH 5.5、55 ℃分别反应0.5、1、2、4、6 及8 h,以确定最佳反应时长。最后,综合上述最优参数,进一步考察不同反应温度(30~70 ℃)对FOS产量的影响。
所有反应产物均采用TLC进行分析,并利用Image J软件对TLC结果进行半定量分析,最终结合高效液相色谱法进行精确定量,以准确测定FOS的含量及其组成比例。
1.2.9 高效液相色谱-脉冲安培检测(high performance liquid chromatography-pulsed amperometric detection,HPLC-PAD)分析水解产物
生成的FOS采用高性能阴离子交换层析,在Dionex ICS-5000色谱系统上使用HPLC-PAD进行分析。样品经0.22 μm滤镜稀释过滤后,经Dionex PA200色谱柱检测。洗脱缓冲液为500 mmol/L NaOH溶液,1 mol/L CH3COONa和ddH2O的混合物。按照Wang等[17]的描述进行梯度洗脱。对不同DP值的FOS进行分析,即分别按照葡萄糖(G)、蔗糖(GF)、蔗果三糖(GF2)、蔗果四糖(GF3)、蔗果五糖(GF4)、蔗果六糖(GF5)标准对果糖(F)、果果二糖(FF)、果果三糖(FF2)、果果四糖(FF3)、果果五糖(FF4)、果果六糖(FF5)进行量化[17]。本研究使用的所有标准品均为分析级(纯度>99%)。
1.3 统计学分析
实验数据均采用SPSS 23.0软件进行统计学分析,数据均以“平均值±标准差”表示,多组间比较采用单因素方差分析,P<0.05说明有显著性差异,最后使用Graph Pad Prism 9.5.1软件进行绘图,每个独立的字母代表有显著性差异,所有实验均至少重复3次。
2 结果与分析
2.1 基因组挖掘鉴定内切菊粉酶及其序列分析
基因挖掘是指利用生物信息学、基因组学、转录组学等技术,从海量的基因组数据中系统地发现、鉴定并获取具有重要生物学功能或潜在应用价值的新基因及其序列信息的过程。通过系统的筛选比对,本研究成功鉴定出17个具有潜力的内切菊粉酶候选基因,这些基因在NCBI标注为假定蛋白。为避免重复并提高代表性,排除了同种微生物中高度相似的序列。最终筛选出5个最具潜力的内切菊粉酶候选序列(表1)。接着,对这5个潜在内切菊粉酶与Lipomyces starkeyi NRRLY-11557(NCBI编号:ODQ71402.1)来源的内切菊粉酶的氨基酸序列进行比对,结果如图1-a所示,选择的这几个菊粉酶都含有RDP和WMNEPNGL这2个关键保守序列。WMNEPNGL序列充当亲核试剂,而RDP是催化关键残基的载体[18]。除此之外,研究报道Q、FT、EVP和SVEVF在内切菊粉酶中也是高度保守的,由图1-a可知,潜在的内切菊粉酶均含有这些保守序列。
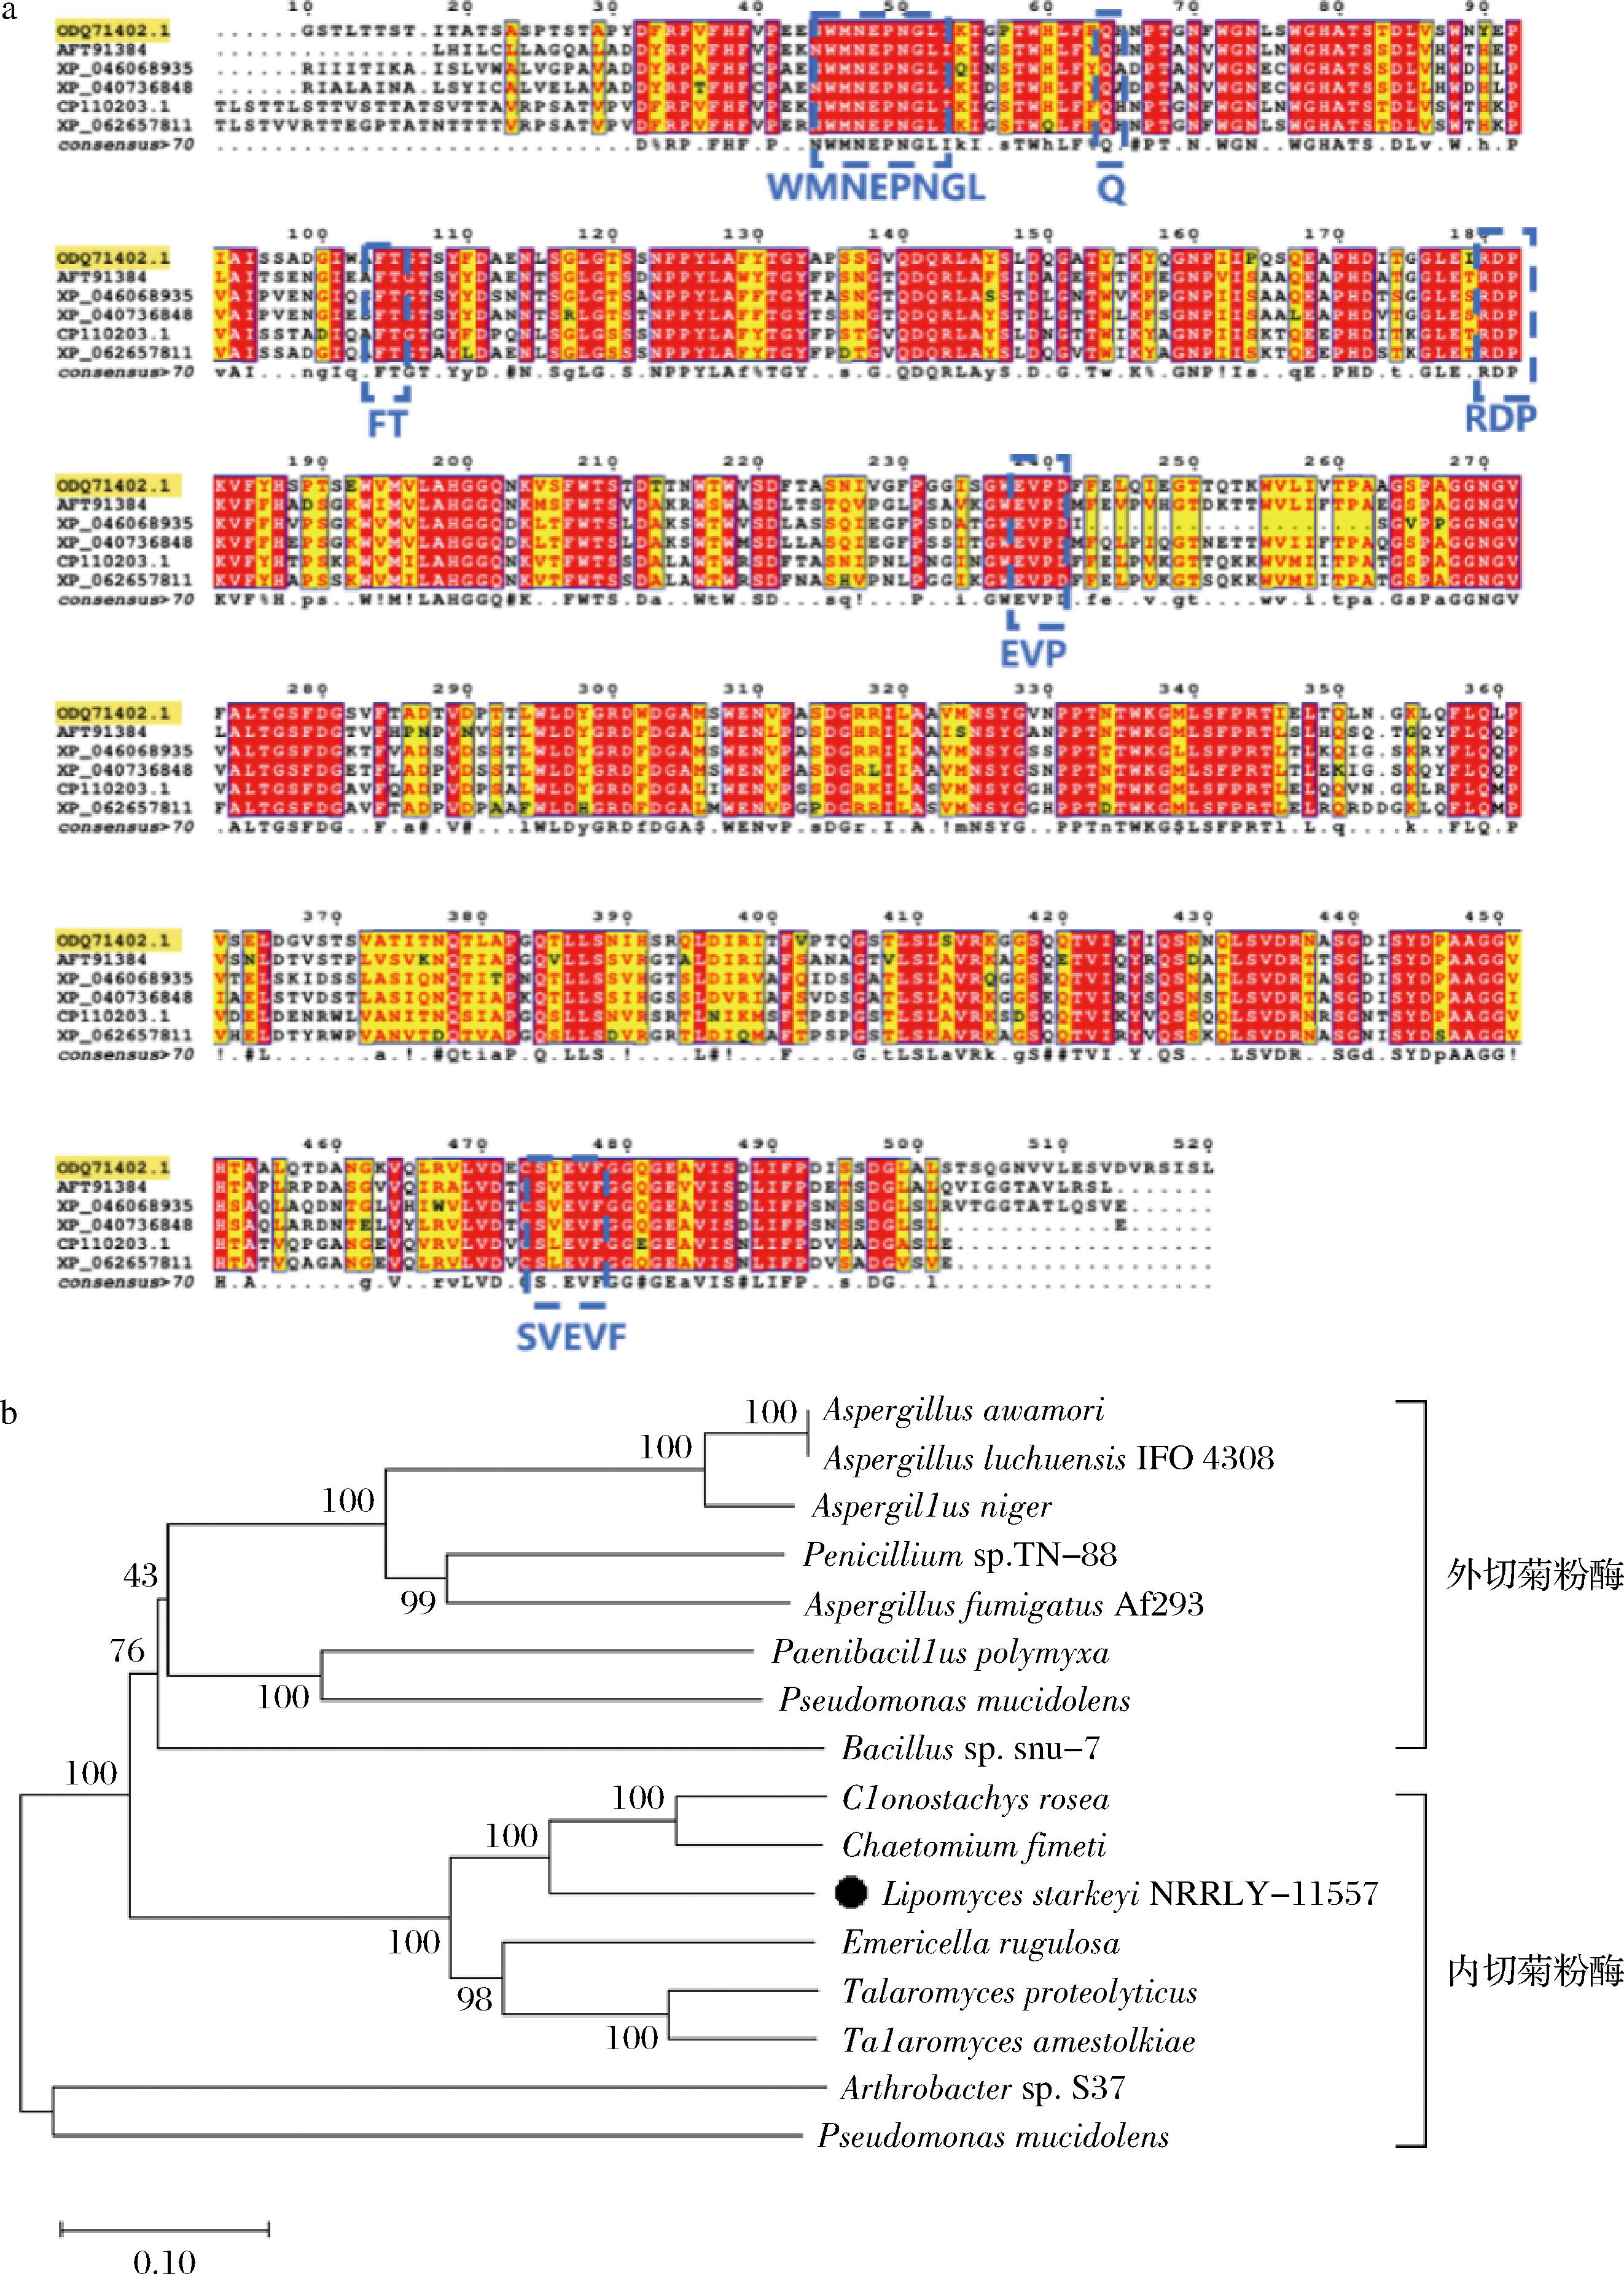
a-保守氨基酸序列比对;b-系统发育分析
图1 内切菊粉酶基因的筛选与鉴定
Fig.1 Screening and identification of endo-inulinase genes
注:相关酶NCBI登录号如下:Aspergillus awamori (CAC44220.1);Aspergillus luchuensis IFO 4308 (GAA87698.1);Aspergillus niger (BAD01476.1);Penicillium sp.TN-88 (BAC16218.1);Aspergillus fumigatus Af293 (EAL86253.1);Paenibacillus polymyxa (AAL82575.1);Pseudomonas mucidolens (AAF44125.1);Bacillus sp.snu-7 (AAK54126.1);Arthrobacter sp.S37 (CAB63119.1);Pseudomonas mucidolens (AAF24999.1)。
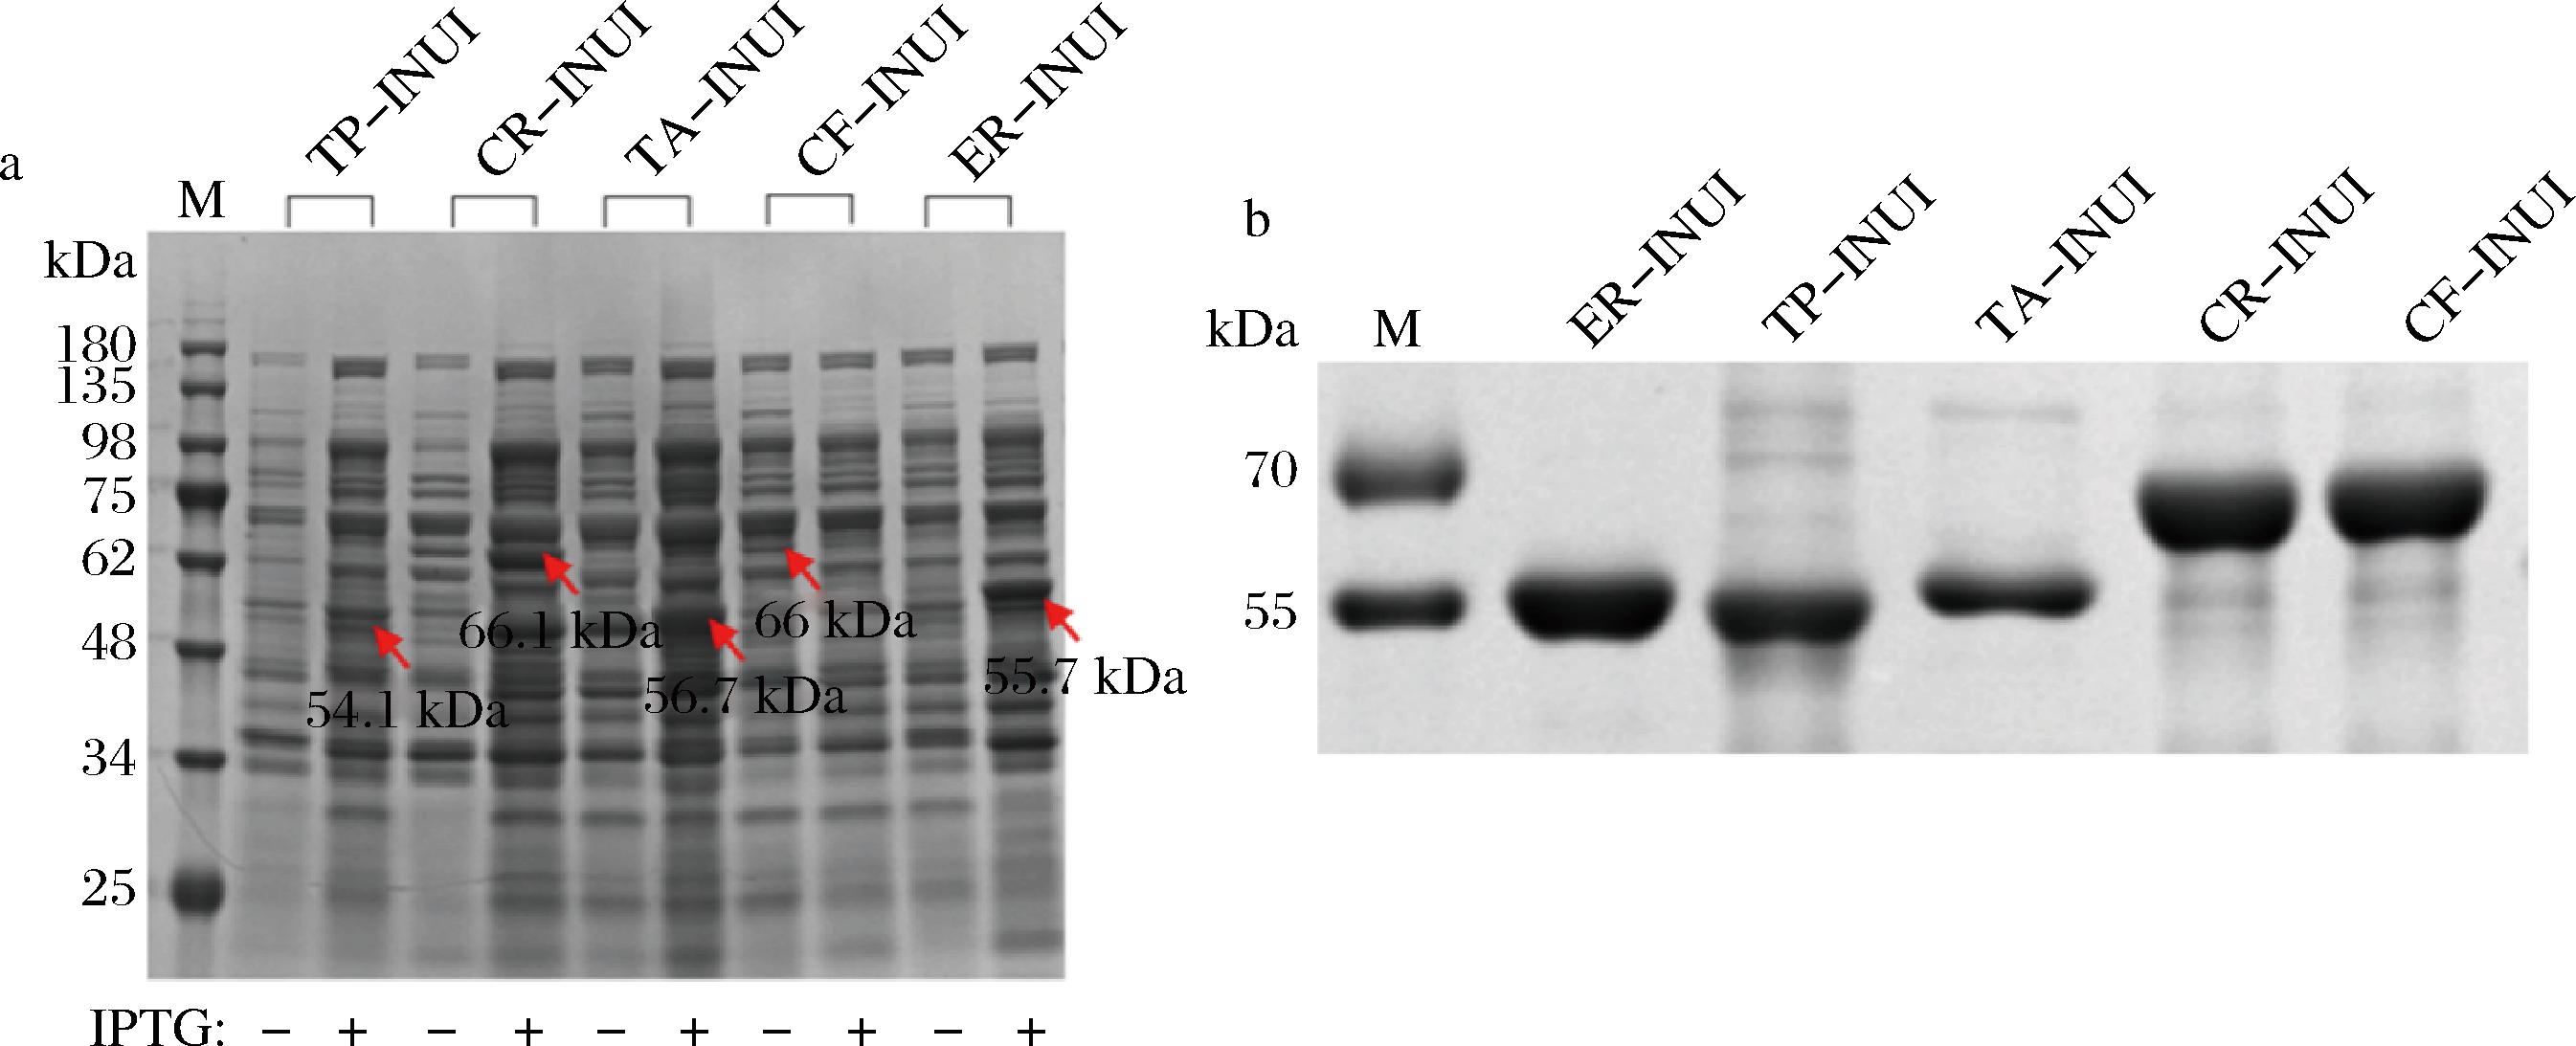
M,蛋白质Marker;IPTG+/-,添加或不添加IPTG诱导剂进行培养;TP-INUI,Talaromyces proteolyticus来源的内切菊粉酶;CR-INUI,Clonostachys rosea来源的内切菊粉酶;CF-INUI,Chaetomium fimeti来源的内切菊粉酶;TA-INUI,Talaromyces amestolkiae来源的内切菊粉酶。
a-重组内切菊粉酶胞内上清液;b-纯化的重组内切菊粉酶
图2 重组内切菊粉酶的SDS-PAGE分析
Fig.2 SDS-PAGE analysis of recombinant endo-inulinases
表1 基于NCBI数据库筛选获得的内切菊粉酶候选基因
Table 1 Candidate endo-inulinase genes obtained by screening the NCBI database
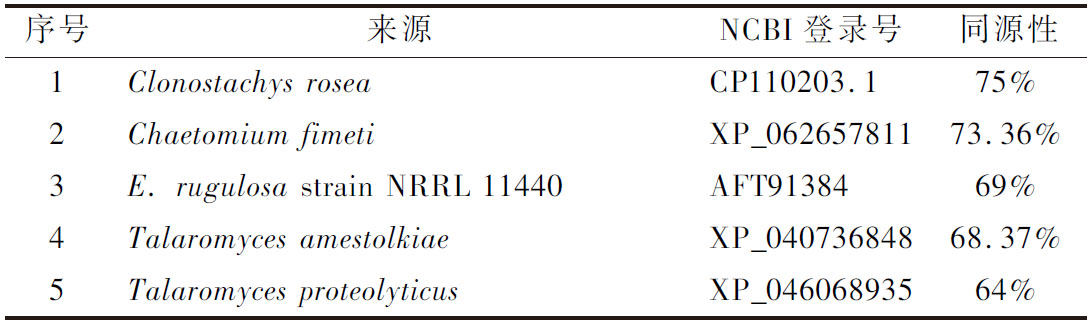
序号来源NCBI登录号同源性1Clonostachys roseaCP110203.175%2Chaetomium fimetiXP_062657811 73.36%3E. rugulosa strain NRRL 11440AFT9138469%4Talaromyces amestolkiaeXP_04073684868.37%5Talaromyces proteolyticusXP_04606893564%
通过对5个候选序列进行系统发育分析(图1-b),筛选到的5个序列与来源于Lipomyces starkeyi NRRL Y-11557的内切菊粉酶聚于同一进化枝,表明其亲缘关系较近;而与外切菊粉酶序列分别位于不同分支,进化距离较远。上述系统发育结果支持这5个目标氨基酸序列属于内切菊粉酶的可能性。
2.2 菊粉酶基因在E.coli中的表达
为了阐明5种内切菊粉酶的性质,将编码这些酶的基因克隆至pET-28a(+)表达载体,并转化至感受态E.coli BL21(DE3)细胞中进行表达。为验证目的蛋白的表达情况,收集诱导后的菌体,经超声波破碎、离心后,取胞内上清液进行SDS-PAGE分析。结果如图2-a所示,所有样品在预期分子质量处均可见清晰的目的条带,表明5种内切菊粉酶均在E.coli中成功实现可溶性表达。
菊粉酶/蔗糖酶活性比(I/S)是评估菊粉酶水解特性的关键指标,它利用酶的底物特异性来快速区分内切和外切菊粉酶。当I/S>1时,菊粉酶属于内切酶;当I/S<1时,菊粉酶属于外切酶。该结果源于内切酶与外切酶不同的催化机制:内切酶的活性中心呈封闭口袋状,可高效结合并随机切割菊粉长链内部的β-2,1糖苷键;而外切酶则因其开放的活性中心结构,更偏好从链末端水解蔗糖等短链底物[19]。为精确比较5种候选酶的催化性能,本研究对纯化后的重组蛋白(图2-b)进行了系统的酶学表征。酶活性测定证实,所有纯化酶的I/S均大于1,进一步验证了其内切酶活性。
随后,测定了各纯化酶在相同蛋白质量浓度下的动力学参数(表2)。综合分析显示,来源于Emericella rugulosa的内切菊粉酶(ER-INUI)展现出显著的催化优势。其米氏常数(Km)为2.25 mg/mL,远低于其他4种酶(11.75~13.42 mg/mL),表明ER-INUI对底物菊粉具有更强的亲和力。同时,其催化常数(Kcat)高达7 252 s-1,较其他酶(48.79~59.50 s-1)高出约2个数量级。因此,基于其更高的底物亲和力、卓越的催化速率等综合动力学特性,本研究选择ER-INUI作为后续深入功能研究与应用的候选酶。
表2 重组内切菊粉酶动力学参数的测定
Table 2 Determination of kinetic parameters of recombinant endo-inulinases

注:不同字母表示差异显著(P<0.05)。
参数TP-INUICR-INUITA-INUICF-INUIER-INUIKm/(mg/mL)13.42±0.12a12.91±0.06b11.93±0.19c11.75±0.10c2.25±0.05dKcat/(1/s)48.79±0.28e59.50±0.36b55.91±0.11c50.73±0.16d7 252.00±0.12a
2.3 ER-INUI的酶学性质表征
探究了温度对重组内切菊粉酶活性的影响。ER-INUI活性的最适温度为50~55 ℃(图3-a),这符合大多数已表征的内切菊粉酶(40~60 ℃)的特性[20]。ER-INUI在低于55 ℃的温度下保温1 h能保持稳定(图3-b)。为全面评估ER-INUI的热稳定性以满足工业生产中对长时间反应的需求,本研究系统测定了其在不同温度下随时间变化的活性保持率(图3-c)。结果表明,该酶在低于55 ℃的条件下具有优异的温度稳定性:于50 ℃孵育4 h后,其活性仍保持在85%以上;即使在55 ℃下处理2 h,活性保留率也超过80%。然而,当温度升至60 ℃时,酶活性迅速下降,1 h内即失活超过50%。结果证明ER-INUI在最适作用温度区间(50~55 ℃)内具备良好的长时间热稳定性。相较于A. niger来源的内切菊粉酶[21],ER-INUI在最适温度下长时间保温表现出更优的稳定性。这种特性有助于在实际应用中提高底物溶解度、防止微生物污染并降低能耗,显示出该酶作为工业生物催化剂的良好潜力。
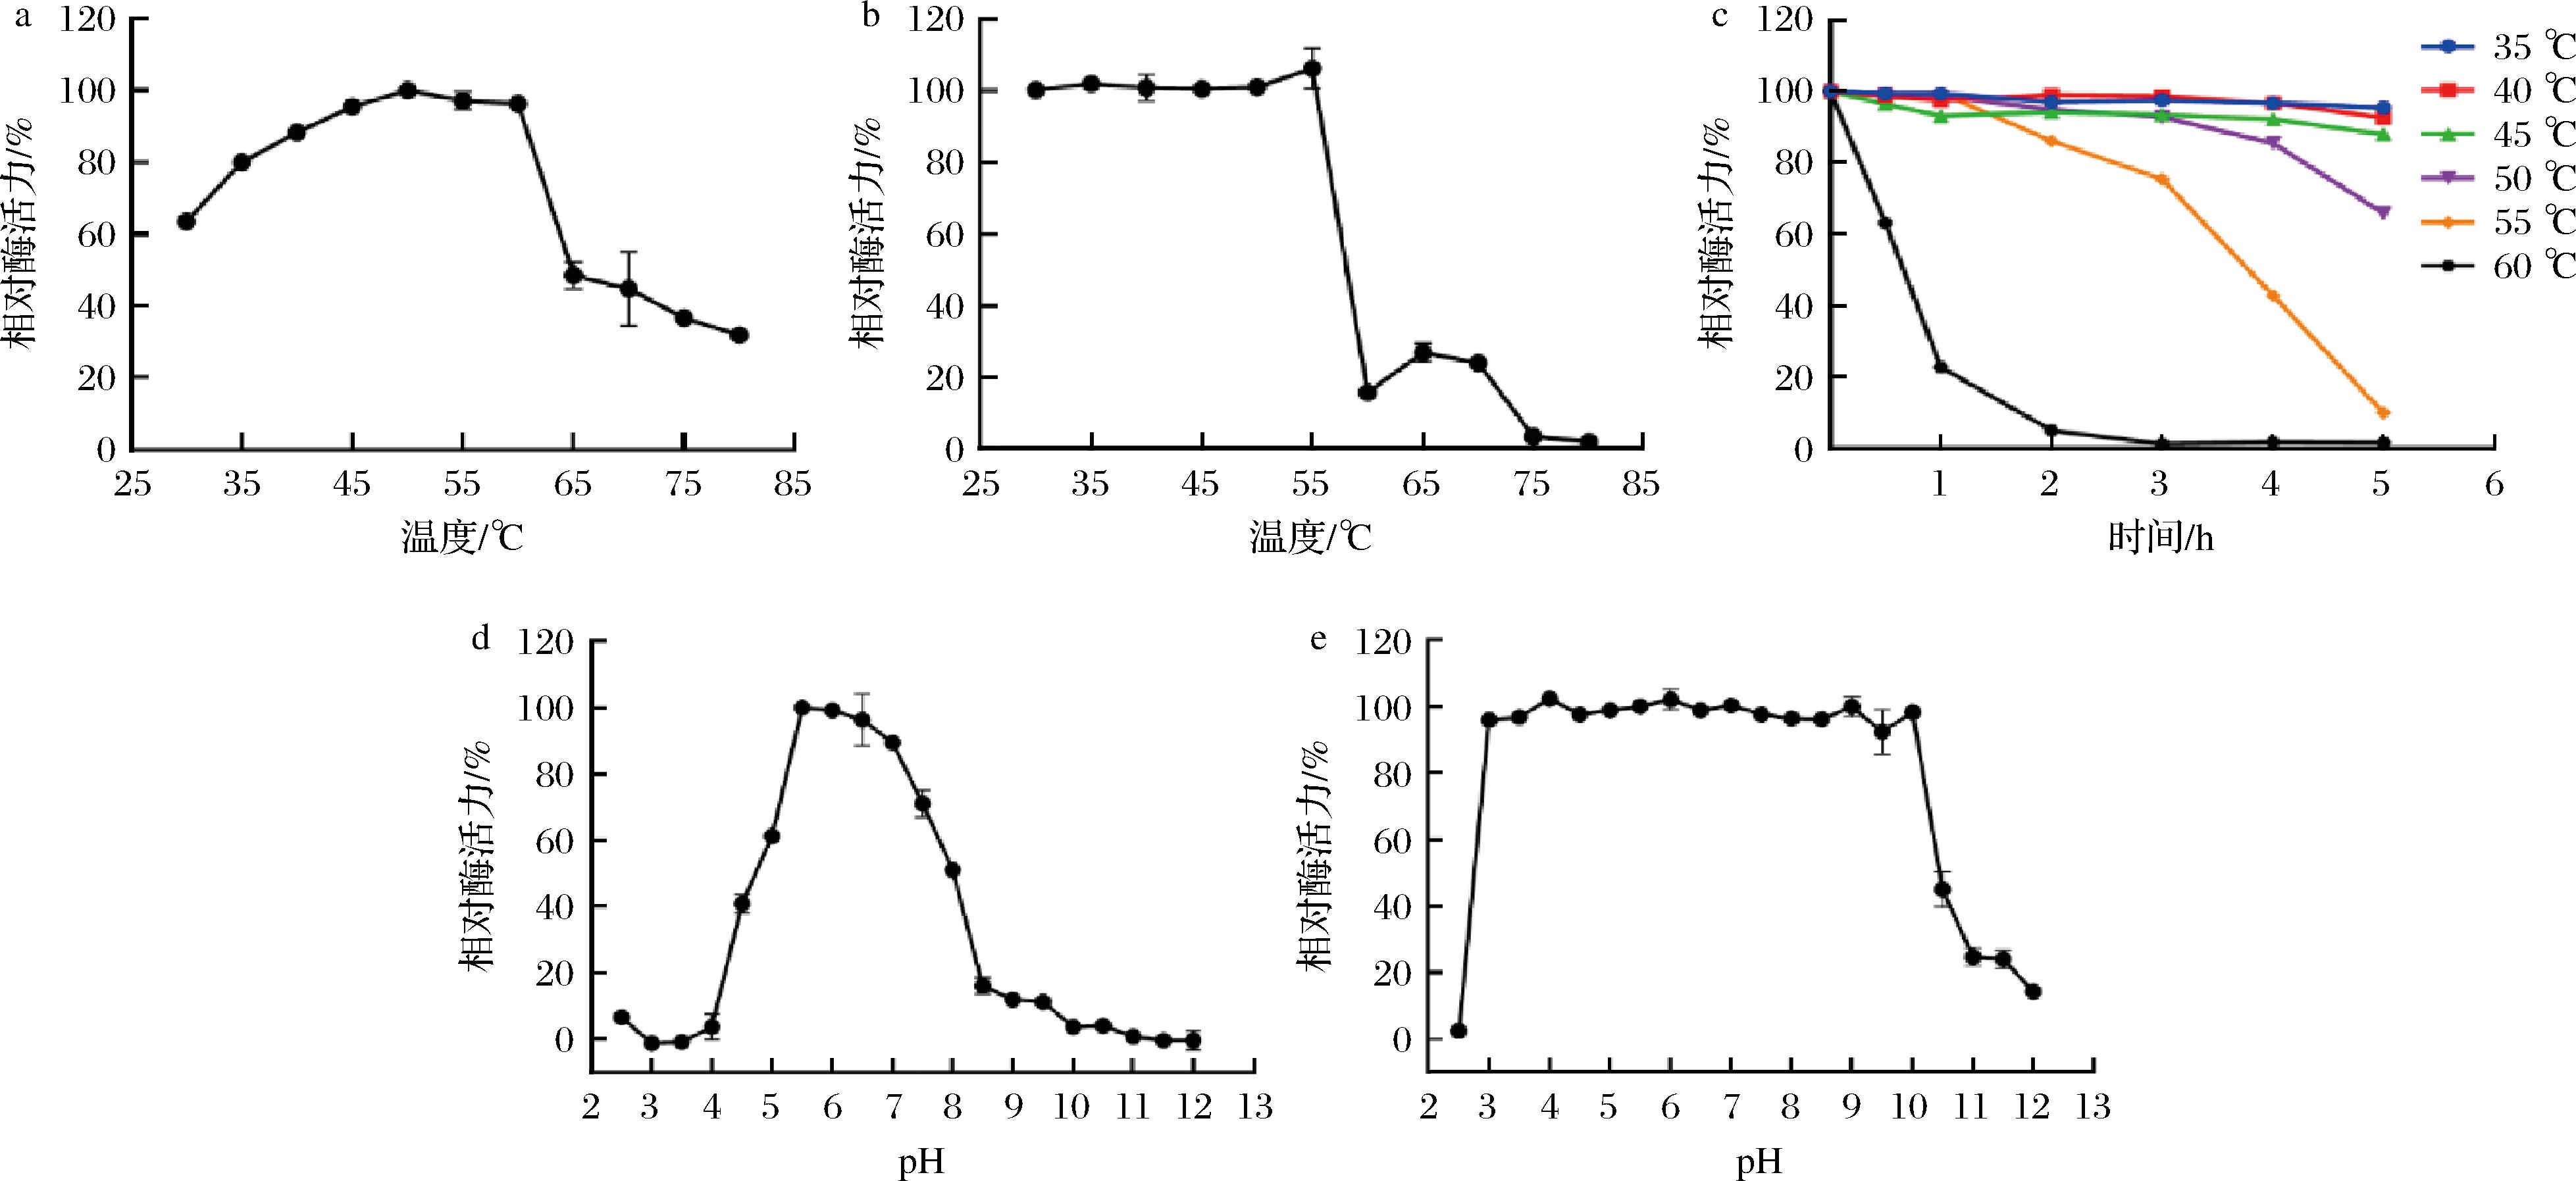
a-最适温度;b-热稳定性;c-不同时间下的热稳定性;d-最适pH;e-pH稳定性
图3 重组内切菊粉酶ER-INUI的酶学性质表征
Fig.3 Characterization of the enzymatic properties of recombinant endo-inulinase ER-INUI
ER-INUI的最适pH值为5~6(图3-d)。在pH 3.0~10.0的广泛pH值范围内孵育24 h后,ER-INUI仍能保留超过85%的活性(图3-e),该酶对pH值变化具有显著的稳定性,使其成为一种极具应用前景的工业用生物催化剂。相比之下,真菌内切菊粉酶的最适pH值为4.5~6.0,而细菌内切菊粉酶的最适pH值范围相对更广,为4.0~7.5[13]。
实验测试了13种金属离子在不同浓度下对ER-INUI活性的影响,不同种类及浓度的金属离子对酶活力具有显著差异。结果如表3显示,Ca2+在不同浓度下都能对ER-INUI表现出激活作用。其中,在5 mmol/L Ca2+的激活下,ER-INUI表现出更高效的催化作用,其相对酶活力达到(170.54±1.16)%。这一结果显示,Ca2+对ER-INUI的激活作用显著高于已知的其他内切菊粉酶。这可能是因为酶结合金属与底物之间的离子相互作用,该作用能引导底物分子实现正确定向,从而提升反应速率。Co2+在5 mmol/L浓度下对ER-INUI酶活性无显著影响,提高浓度后对ER-INUI有一定的抑制作用。其他金属离子在不同浓度下表现出强烈抑制作用。不同微生物来源的酶对金属离子的反应不同,是因为蛋白质中氨基酸构象排列的多样化[22]。
表3 金属离子对ER-INUI活性的影响
Table 3 Effects of metal ions on the activity of ER-INUI
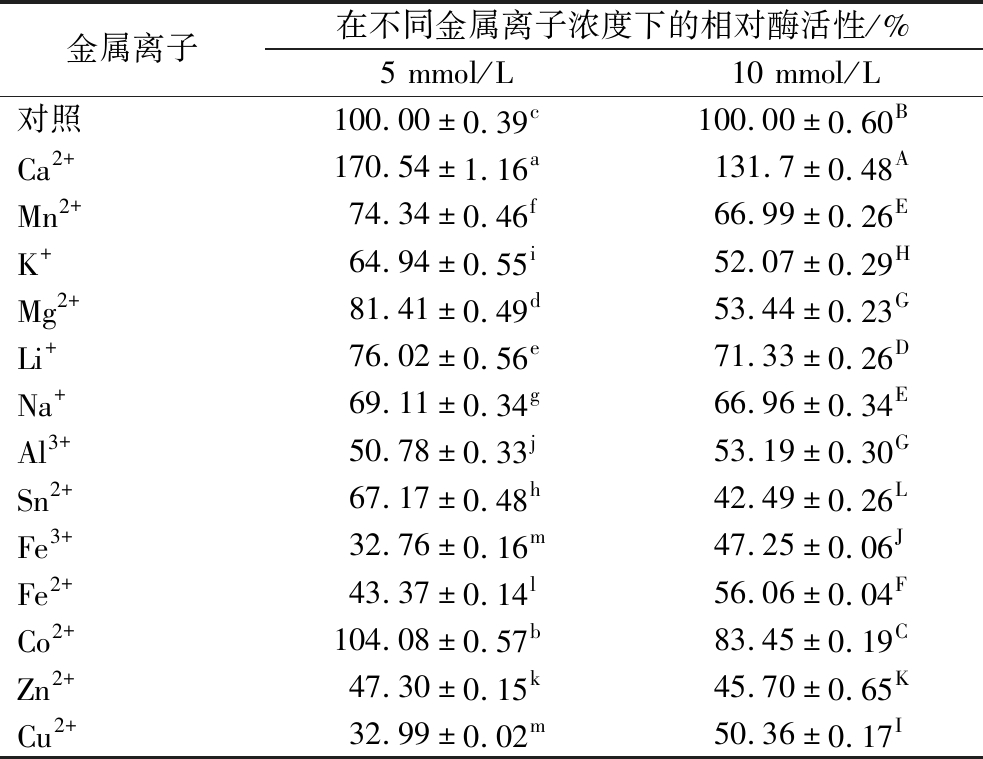
注:不同小写字母表示在浓度5 mmol/L下差异显著(P<0.05),不同大写字母表示在浓度10 mmol/L下差异显著(P<0.05)。
金属离子在不同金属离子浓度下的相对酶活性/%5 mmol/L10 mmol/L对照100.00±0.39c100.00±0.60BCa2+170.54±1.16a131.7±0.48AMn2+74.34±0.46f66.99±0.26EK+64.94±0.55i52.07±0.29HMg2+81.41±0.49d53.44±0.23GLi+76.02±0.56e71.33±0.26DNa+69.11±0.34g66.96±0.34EAl3+50.78±0.33j53.19±0.30GSn2+67.17±0.48h42.49±0.26LFe3+32.76±0.16m47.25±0.06JFe2+43.37±0.14l56.06±0.04FCo2+104.08±0.57b83.45±0.19CZn2+47.30±0.15k45.70±0.65KCu2+32.99±0.02m50.36±0.17I
2.4 水解条件优化
在ER-INUI酶法制备FOS的过程中,多种因素对产物FOS中GF2~GF5组分的含量有显著影响(表4,图4)。通过TLC对各单因素进行半定量分析(表4),确定了较优的反应条件范围,再通过HPLC-PAD测定GF2~GF5含量变化趋势,结果如图4所示。
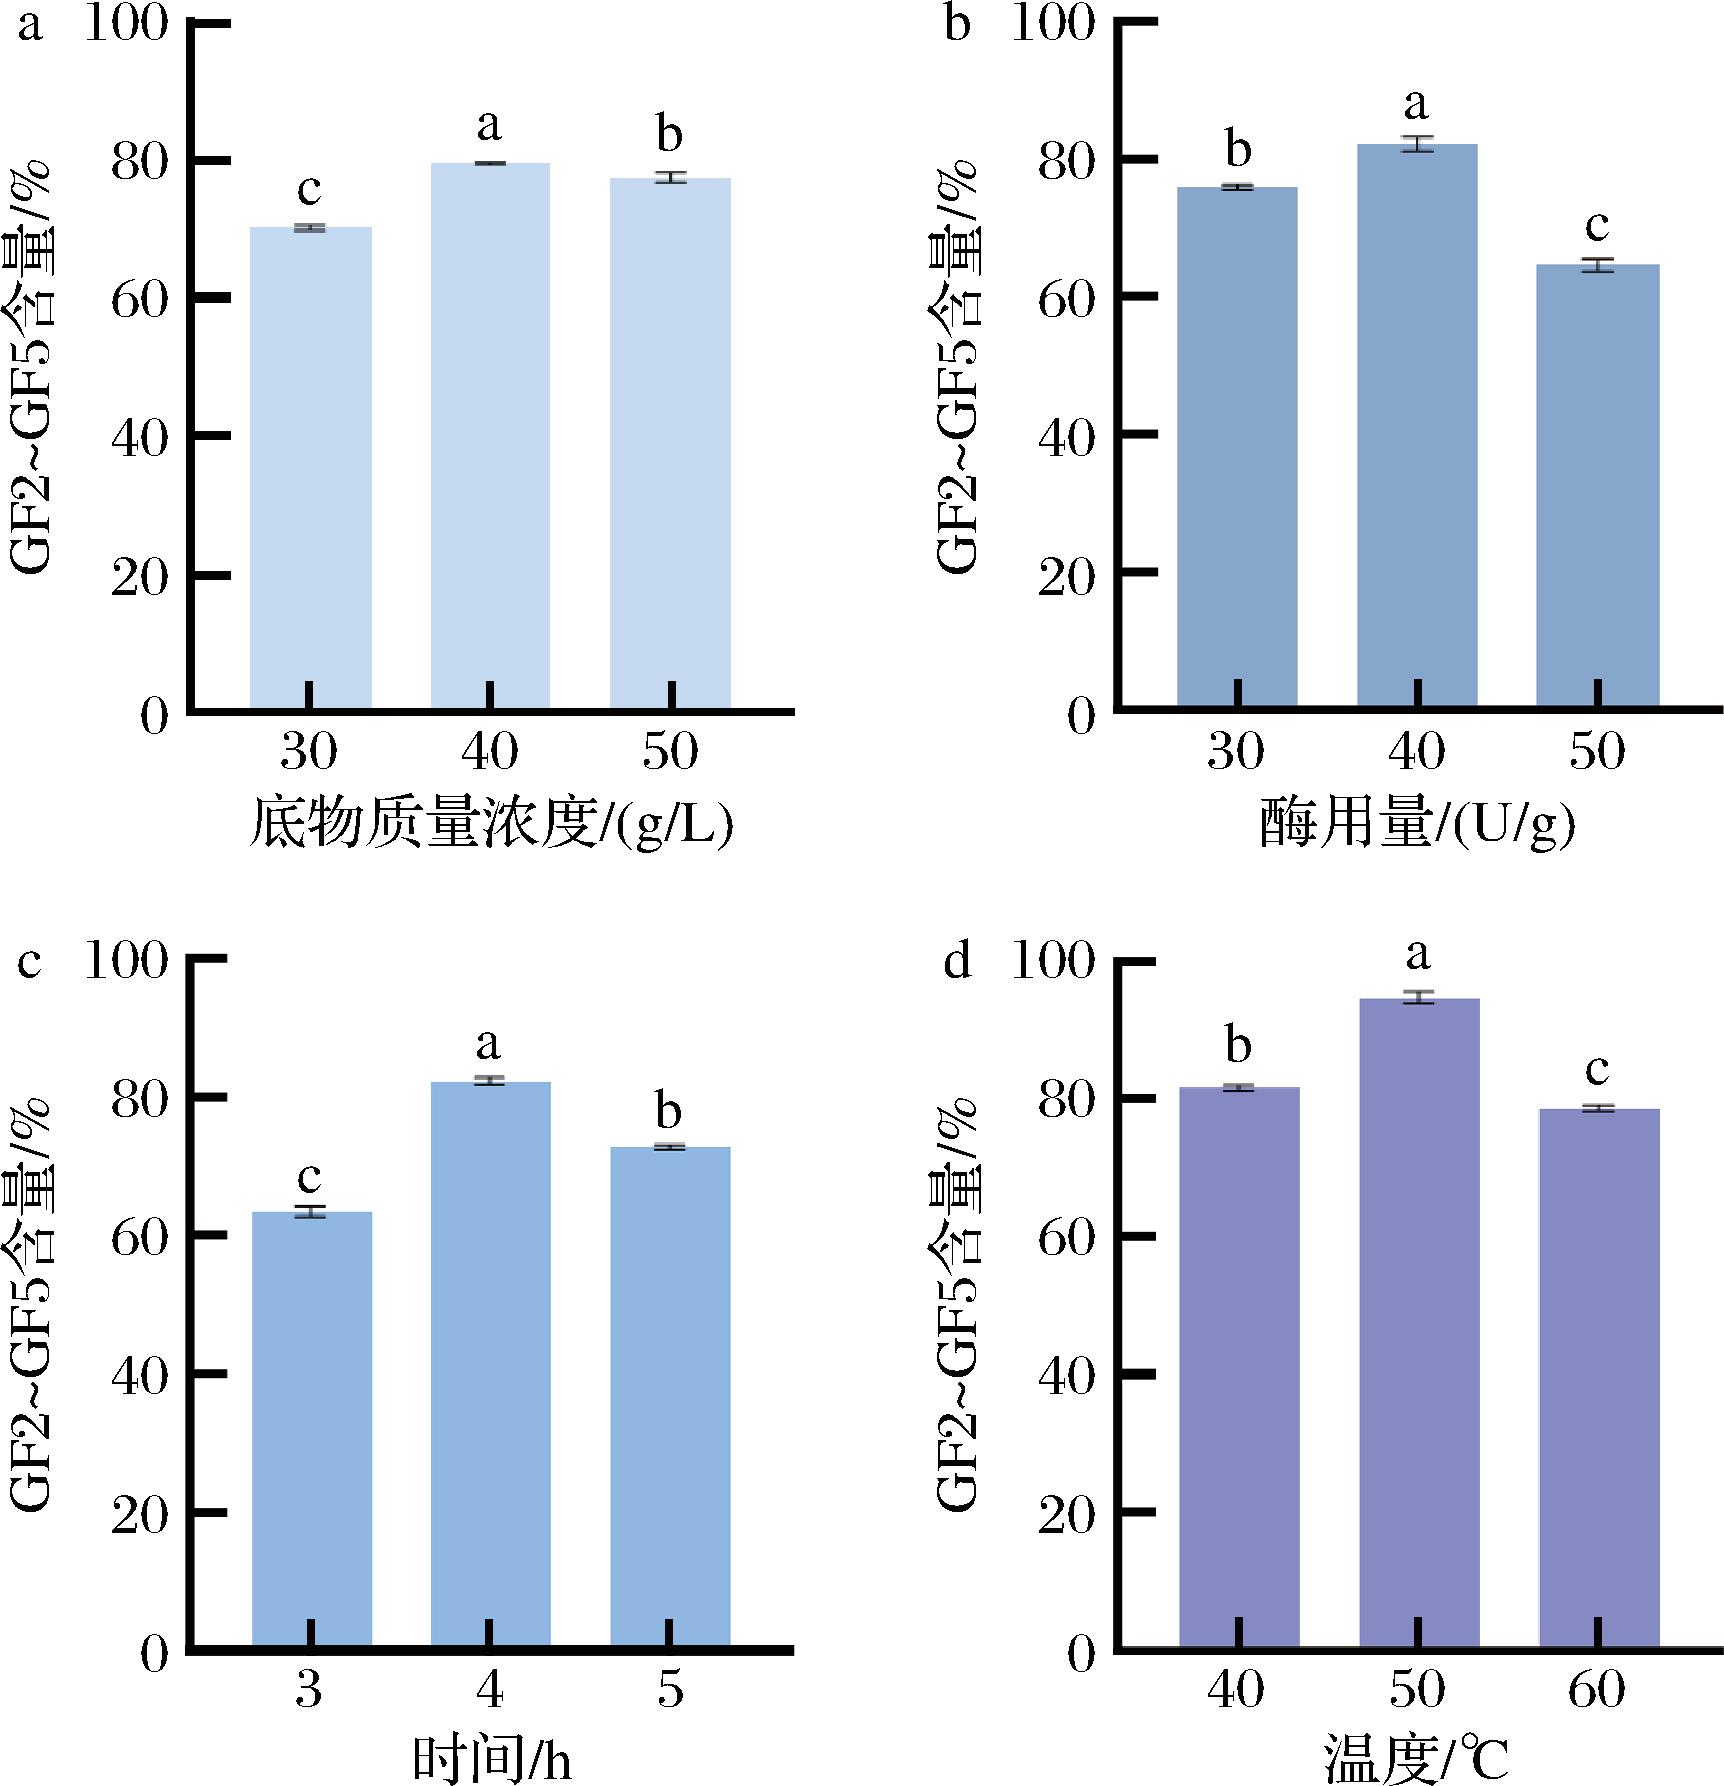
a-底物浓度;b-酶用量;c-时间;d-温度
图4 HPLC-PAD分析ER-INUI酶解菊粉产物中FOS(GF2~GF5)的含量
Fig.4 HPLC-PAD analysis of FOS (GF2-GF5) in inulin enzymatic hydrolysates
注:不同字母表示差异显著(P<0.05)。
表4 不同反应条件对FOS中GF2~GF5含量的单因素优化结果
Table 4 Single-factor optimization results of different reaction conditions on GF2-GF5 content in FOS
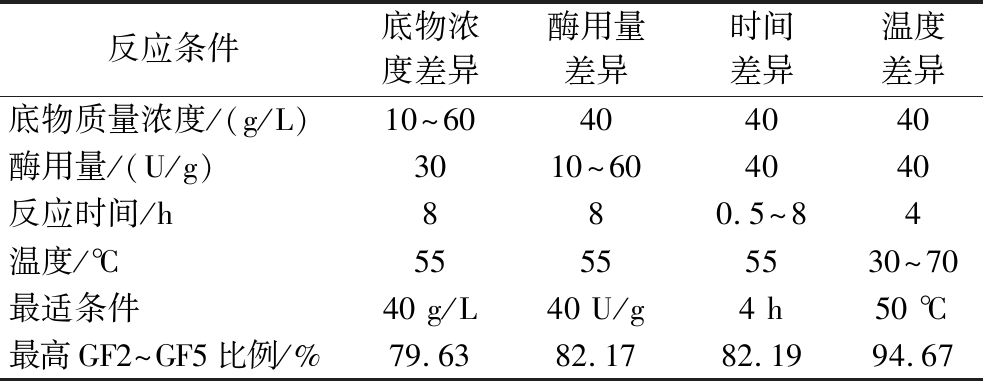
反应条件底物浓度差异酶用量差异时间差异温度差异底物质量浓度/(g/L)10~60404040酶用量/(U/g)3010~604040反应时间/h880.5~84温度/℃55555530~70最适条件40 g/L40 U/g4 h50 ℃最高GF2~GF5比例/%79.6382.1782.1994.67
当底物质量浓度在30~50 g/L范围内变化时,GF2~GF5含量随浓度升高先增加后降低(图4-a),在40 g/L时GF2~GF5含量最高(79.63%)。在30~50 U/g范围内,GF2~GF5含量随酶用量增加呈先增加后降低趋势(图4-b),在40 U/g时达到最高值(82.17%)。继续提高酶量至50 U/g,含量略有下降,说明酶用量过多并未进一步提高产物得率,可能与反应平衡或产物抑制有关。在3~5 h内,GF2~GF5含量随时间延长先增加后降低,4 h时GF2~GF5比例达到最高(82.19%)(图4-c)。延长时间至5 h,含量未见明显提高,说明反应在4 h时已趋于平衡。在40~60 ℃范围内,GF2~GF5含量随温度升高而先增加后降低,50 ℃时达到最大值(94.67%)(图4-d)。温度继续升高至60 ℃,含量明显下降,可能与高温下酶部分失活有关。
综上所述,ER-INUI生产FOS的较优反应条件为:底物质量浓度40 g/L、酶用量40 U/g、反应时间4 h、反应温度50 ℃,在此条件下GF2~GF5比例可超过94%。据报道,多种微生物来源的内切菊粉酶均可催化菊粉生成FOS,其产率在70%~92%[23]。
2.5 菊粉水解产物分析
在上述最适条件下对反应后生成出的FOS的糖类进行HPLC-PAD分析,结果如图5所示。14.79%的DP3、47.66%的DP4、26.33%的DP5和5.88%的DP6为主要的水解产物,约占总FOS含量的95%。此外,还存在少量蔗糖(0.51%)与单糖(4.82%)。依据HPLC(图5),菊粉底物自身含有单糖杂质,这表明在ER-INUI酶解产物中检测到的单糖并非该酶作用产生。DP值在3~6的FOS能够通过快速被微生物发酵,生成有益代谢物(如丁酸盐),从而高效、快速地修复脂多糖损伤的肠道屏障,维持肠道健康[24]。这一特性使其在应对肠道感染、炎症或饮食压力导致的急性肠道损伤时具有重要的潜在应用价值。不同来源的内切菊粉酶,其产物表现出不同的聚合度,本研究的ER-INUI酶主要产物即为DP3-6,表明其良好的应用潜力。
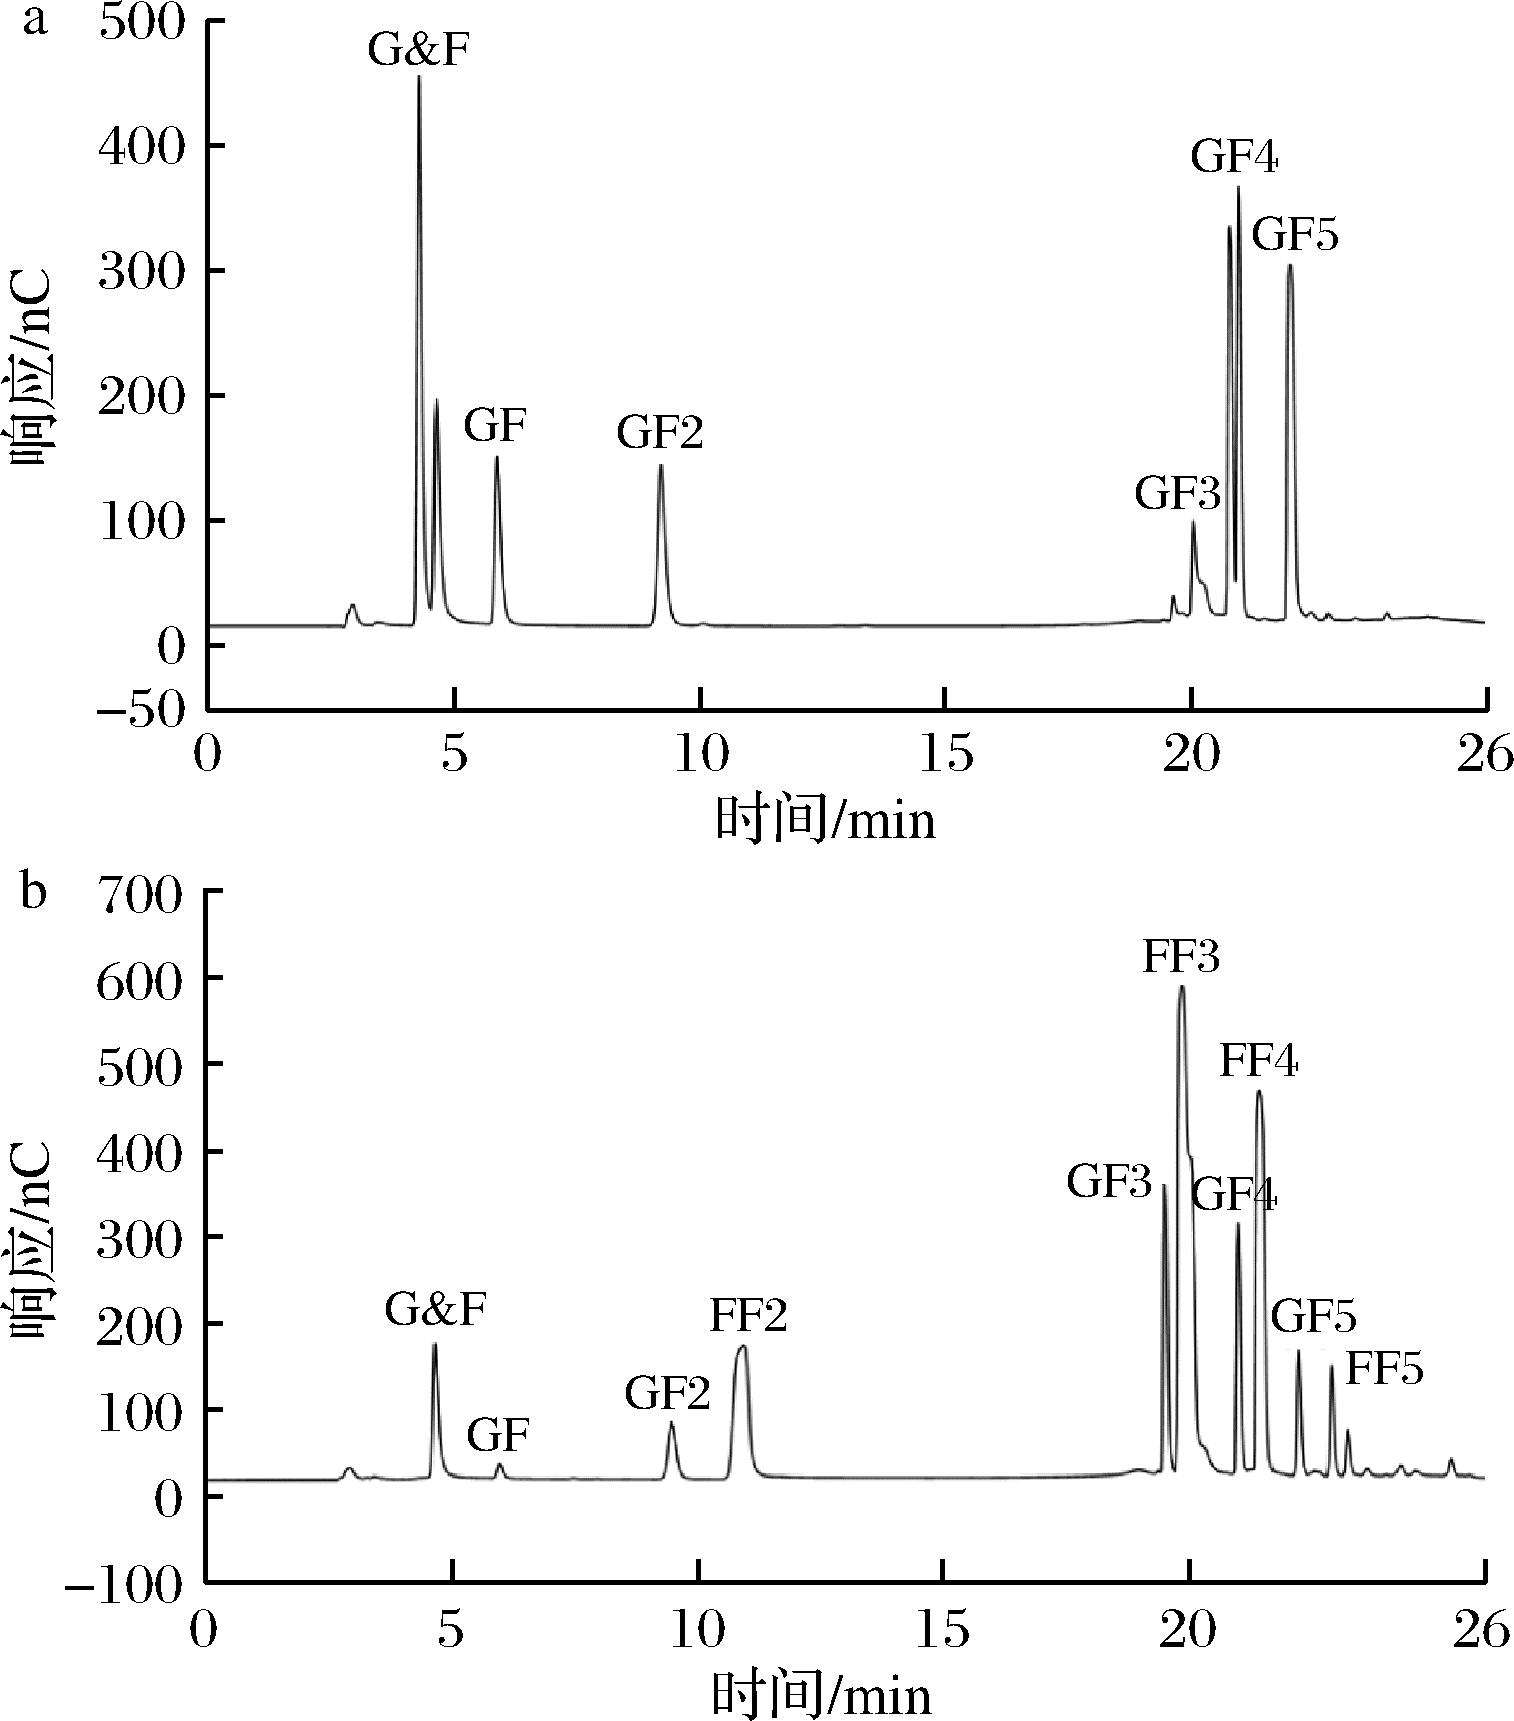
a-混合标准G、F、GF、GF2、GF3、GF4和GF5;b-ER-INUI与菊粉反应后生成的FOS过程中糖类的HPLC-PAD
图5 ER-INUI与40 g/L菊粉生产FOS过程中糖类的HPLC-PAD分析
Fig.5 HPLC-PAD analysis of saccharides obtained during FOSs production from 40 g/L inulin
综上所述,本研究基于系统性的基因挖掘与功能筛选策略,成功从特定微生物基因组中分离并鉴定了一种新型内切菊粉酶ER-INUI。相较于目前已知的传统内切菊粉酶,该酶在催化效率、底物特异性及热稳定性等多个维度均表现出优秀的性能和酶学性质。通过酶动力学参数测定发现,其Km为2.25 mmol/L,明显低于多数已报道的同类型酶(表5),这一结果充分证明ER-INUI对底物菊粉具有更强的结合效率和更高效的催化反应。
表5 动力学参数及水解产物的比较
Table 5 Comparison of kinetic parameters and hydrolysis products
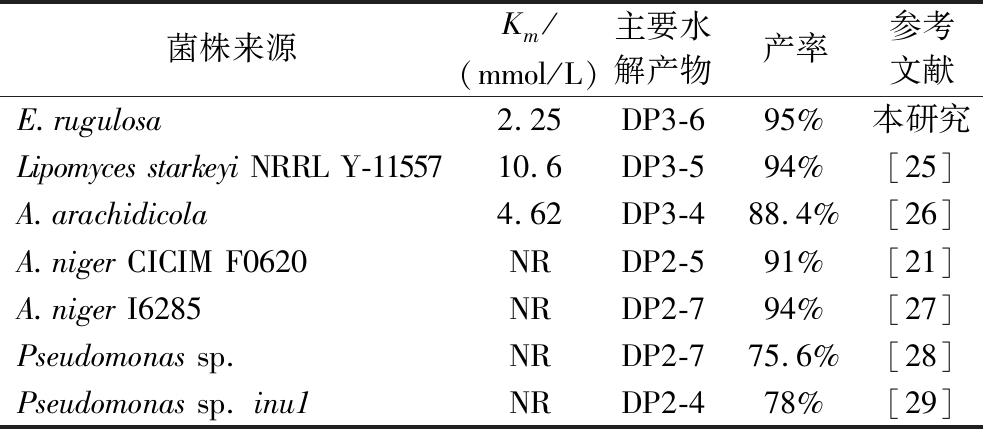
注:NR表示未报道。
菌株来源Km/(mmol/L)主要水解产物产率参考文献E.rugulosa2.25DP3-695%本研究Lipomyces starkeyi NRRL Y-1155710.6DP3-594%[25]A.arachidicola4.62DP3-488.4%[26]A.niger CICIM F0620NRDP2-591%[21]A.niger I6285NRDP2-794%[27]Pseudomonas sp.NRDP2-775.6%[28]Pseudomonas sp. inu1NRDP2-478%[29]
更为关键的是,ER-INUI在催化进程中所生成的FOS产物组成极为理想,其中以GF2至GF5为主的FOS在总产物中的占比高达95%,体现出高效的产物特异性。与已报道的其他来源内切菊粉酶产物相比(表5),ER-INUI的FOS占比达到最高。这一显著优势使其在食品、医药等领域具有更为广阔的应用前景。
进一步剖析发现,ER-INUI催化生成的FOS中,GF3和GF4的含量相对较高,分别为47.66%和26.33%。这种具有特定组成的FOS在调节肠道菌群、增强免疫力等方面具有更为突出的效能。而且,通过对不同反应条件下产物组成的解析可知,ER-INUI在较宽的温度和pH值区间内均能维持产物组成的稳定性,这为实际生产中的工艺调控提供了极大便利。同时,反应未产生果糖、葡萄糖等非目标副产物,这一特性有效规避了不必要的代谢副反应,大幅降低了后续分离、纯化等工艺环节的操作难度。
通过反应体系及纯化工艺的进一步优化,本研究显著降低了FOS生产过程中分离与纯化阶段的技术壁垒与经济成本,进而使整个酶催化生产过程更为简洁、高效且可控。最终,该酶的实际应用不仅显著提升了目标产物的得率与最终纯度,还减少了生产过程中的人力资源投入、物料损耗及能源消耗,显著降低了综合生产成本,展现出广泛的工业化应用潜力与可观的经济效益前景。
3 结论
近年来,随着益生元研究日益受到关注,从相关微生物资源中挖掘新型工业酶已成为一个重要方向。然而,传统的微生物筛选策略存在明显局限性,包括菌株分离困难、目的酶基因获取效率低、极端环境微生物培养条件苛刻以及整体开发周期长、成本高等问题。本实验通过基因组挖掘,从NCBI数据库中鉴定出5个现有文献中未表征的推定的内切菊粉酶基因。并将这些基因成功克隆,且在E.coli表达系统中以可溶形式实现异源表达。功能表征显示,与其他4种内切菊粉酶相比,ER-INUI在催化效率、底物转化率及热稳定性方面均表现更优。后续将通过蛋白质纯化与定量酶学分析,以深入揭示其催化特性与产物构成。ER-INUI对菊粉底物表现出高效的催化活性,Km和Kcat值分别为2.25 mmol/L和7 252 s-1。同时ER-INUI具有显著的热稳定性和广泛的pH耐受性,ER-INUI的最适温度为50~55 ℃,最适pH值为5.0~6.0,在50 ℃下保温4 h其活性均可超过85%的活性。在一定浓度下Ca2+对ER-INUI有激活作用。水解产物分析表明,ER-INUI主要催化DP值为3~6的FOS的产生。此外,本研究还通过条件优化得到了FOS生产条件,在pH 5.5、温度50 ℃的40 g/L菊粉体系中加入40 U/g的ER-INUI反应4 h,得到的FOS产物的GF2-GF5比例高达95%,可最大化降低成本并提高生产效率。
[1] Dou Y Q, Yu X, Luo Y L, et al. Effect of fructooligosaccharides supplementation on the gut microbiota in human: A systematic review and meta-analysis[J]. Nutrients, 2022, 14(16):3298.
[2] Costa G T, Vasconcelos Q D J S, Aragão G F. Fructooligosaccharides on inflammation, immunomodulation, oxidative stress, and gut immune response: A systematic review[J]. Nutrition Reviews, 2022, 80(4):709-722.
[3] 刘洋, 瞿恒贤, 张龙飞, 等. 低聚糖对益生菌发酵乳功能特性的影响[J]. 食品与发酵工业, 2022, 48(5):75-80.Liu Y, Qu H X, Zhang L F, et al. Effects of oligosaccharides on the functional characteristics of probiotic fermented milk[J]. Food and Fermentation Industries, 2022, 48(5):75-80.
[4] 王鹏, 刚梦萱, 张臣臣, 等. 母乳源乳酸菌的低聚糖利用特性研究[J]. 食品与发酵工业, 2022, 48(11):101-106.Wang P, Gang M X, Zhang C C, et al. Oligosaccharide utilization characteristics of lactic acid bacteria from breast milk[J]. Food and Fermentation Industries, 2022, 48(11):101-106.
[5] Hughes R L, Alvarado D A, Swanson K S, et al. The prebiotic potential of inulin-type fructans: A systematic review[J]. Advances in Nutrition, 2022, 13(2):492-529.
[6] 李方华, 马静, 李庆帅, 等. 低聚果糖功能应用及生物转化制备途径[J]. 中国食品添加剂, 2025, 36(5):69-74.Li F H, Ma J, Li Q S, et al. Functional application and biotransformation pathways of fructooligosaccharide[J]. China Food Additives, 2025, 36(5):69-74.
[7] Neha N, Sivaperumal P, Roy A. Antibacterial potential of inulinase enzyme obtained from Nocardiopsis sp[J]. Journal of Advanced Pharmaceutical Technology &Research, 2022, 13(Suppl 1): S93-S97.
[8] Leaerts L, Porras-Domínguez J R, Versluys M, et al. A refined nomenclature system to better discriminate endo- and exo-type fructanases and glucanases[J]. Biomolecules, 2024, 15(1):11.
[9] Shin J, Lee G, Chi W J, et al. Engineering Saccharomyces boulardii for cell surface display of heterologous protein[J]. Journal of Biotechnology, 2025, 397:44-50.
[10] Versluys M, Porras-Domínguez J R, Voet A, et al. Insights in inulin binding and inulin oligosaccharide formation by novel multi domain endo-inulinases from Botrytis cinerea[J]. Carbohydrate Polymers, 2024, 328:121690.
[11] 包敏. 内切菊粉酶的基因挖掘、异源表达和半理性改造[D]. 无锡: 江南大学, 2020.Bao M. Genome mining, heterologous expression and semi-rational engineering of endo-inulinase[D]. Wuxi: Jiangnan University, 2020.
[12] Gao W, Bao Y M, Liu Y, et al. Characterization of thermo-stable endoinulinase from a new strain Bacillus smithii T7[J]. Applied Biochemistry and Biotechnology, 2009, 157(3):498-506.
[13] Bao M, Niu C T, Xu X, et al. Identification, soluble expression, and characterization of a novel endo-inulinase from Lipomyces starkeyi NRRL Y-11557[J]. International Journal of Biological Macromolecules, 2019, 137:537-544.
[14] Sengupta S, Jana M L, Sengupta D, et al. A note on the estimation of microbial glycosidase activities by dinitrosalicylic acid reagent[J]. Applied Microbiology and Biotechnology, 2000, 53(6):732-735.
[15] 陈晓明. Aspergillus ficuum菊粉酶的基因克隆、表达及其结构与功能研究[D]. 无锡: 江南大学, 2012.Chen X M. Cloning and expression of the gene and structure-function analysis of inulinases from Aspergillus ficuum[D]. Wuxi: Jiangnan University, 2012.
[16] 冯碧薇, 张赓, 李悦, 等. 内切菊粉酶基因在毕赤酵母中的高水平表达研究[J]. 复旦学报(自然科学版), 2012, 51(1):99-104.Feng B W, Zhang G, Li Y, et al. High level expression of the endo-inulinase gene in Pichia pastoris[J]. Journal of Fudan University (Natural Science), 2012, 51(1):99-104.
[17] Wang D, Li F L, Wang S A. A one-step bioprocess for production of high-content fructo-oligosaccharides from inulin by yeast[J]. Carbohydrate Polymers, 2016, 151:1220-1226.
[18] Chi Z M, Chi Z, Zhang T, et al. Inulinase-expressing microorganisms and applications of inulinases[J]. Applied Microbiology and Biotechnology, 2009, 82(2):211-220.
[19] Rawat H K, Ganaie M A, Kango N. Production of inulinase, fructosyltransferase and sucrase from fungi on low-value inulin-rich substrates and their use in generation of fructose and fructo-oligosaccharides[J]. Antonie van Leeuwenhoek, 2015, 107(3):799-811.
[20] Kilimci U, Evli S, Önde B, et al. Inulinase immobilized lectin affinity magnetic nanoparticles for inulin hydrolysis[J]. Applied Biochemistry and Biotechnology, 2021, 193(5):1415-1426.
[21] He M, Wu D, Wu J, et al. Enhanced expression of endoinulinase from Aspergillus niger by codon optimization in Pichia pastoris and its application in inulooligosaccharide production[J]. Journal of Industrial Microbiology &Biotechnology, 2014, 41(1):105-114.
[22] Markosyan L, Vardanyan A. Properties of the extracellular alkaline inulinase produced by haloalkaliphilic phototrophic bacteria Ectothiorodospirea mobilis[J]. Extremophiles, 2023, 27(3):29.
[23] Singh R S, Singh R P, Kennedy J F. Recent insights in enzymatic synthesis of fructooligosaccharides from inulin[J]. International Journal of Biological Macromolecules, 2016, 85:565-572.
[24] Ariaee A, Wardill H R, Wignall A, et al. The degree of inulin polymerization is important for short-term amelioration of high-fat diet (HFD)-induced metabolic dysfunction and gut microbiota dysbiosis in rats[J]. Foods, 2024, 13(7):1039.
[25] 钮成拓, 包敏, 李崎. Lipomyces starkeyi NRRL Y-11557内切菊粉酶的基因挖掘、表达及应用研究[C]. 中国生物工程学会第十三届学术年会暨2019年全国生物技术大会论文集. 成都: 中国生物工程学会, 2019.Niu C T, Bao M, Li Q. Gene mining, expression and application research of endo-inulinase from Lipomyces starkeyi NRRL Y-11557[C]. Proceedings of the 13th Annual Conference of Chinese Society of Biotechnology &2019 National Biotechnology Conference. Chengdu: Chinese Society for Biotechnology, 2019.
[26] Jiang X L, Zhu Y Y, Zhang W L, et al. Efficient production of inulooligosaccharides from inulin by endoinulinase from Aspergillus arachidicola[J]. Carbohydrate Polymers, 2019, 208:70-76.
[27] Li X, Zhang Q N, Wang W, et al. A novel inulin-mediated ethanol precipitation method for separating endo-inulinase from inulinases for inulooligosaccharides production from inulin[J]. Frontiers in Bioengineering and Biotechnology, 2021, 9:679720.
[28] Hyun Kim D, Jin Choi Y, Koo Song S, et al. Production of inulo-oligosaccharides using endo-inulinase from a Pseudomonas sp[J]. Biotechnology Letters, 1997, 19(4):369-372.
[29] Yun J W, Choi Y J, Song C H, et al. Microbial production of inulo-oligosaccharides by an endoinulinase from Pseudomonas sp. Expressed in Escherichia coli[J]. Journal of Bioscience and Bioengineering, 1999, 87(3):291-295.