米香型白酒是以大米为原料,小曲为糖化发酵剂,经固态培菌糖化、加水半液态发酵以及蒸馏而成的白酒[1]。由于米香型白酒发酵工艺及其特殊的风味,在白酒体系中深受消费者喜爱。小曲是白酒发酵的主要微生物来源,其微生物群落结构在很大程度上决定了发酵性能与产香特征[2]。然而,由于传统制曲工艺受原料、温湿度及地域环境等多因素影响,不同批次小曲的微生物群落差异显著[3],从而导致白酒生产中存在质量波动、产量偏低及生产成本较高等问题。近年来,基于功能菌株或微生物群落接种的生物强化调控技术被逐步应用于小曲制备、酒醅发酵等环节[4]。例如,芽孢杆菌属(Bacillus)可促进有机酸生成,从而改善发酵体系的代谢活性[5];产纤维素酶细菌的引入能够显著提升细菌群落多样性及总酯含量[6]。在发酵过程中引入功能性微生物群,不仅能有效提高醇、酸、酯等风味物质的总含量,还可改善产香的方向性。然而,单一功能菌的接种仍难以实现对白酒风味种类的精细调控。因此,在白酒小曲生产中,通过合理控制功能菌群间的比例关系,如调节乳酸菌或酵母类群的组合比例,实现风味物质的多样化合成,是进一步提升白酒风味多样性的重要途径。
酵母作为一类酿造微生物,不仅是白酒酒精发酵过程中的主导力量,其香气生产性能对白酒的品质与风味特征具有决定性作用[7]。在白酒发酵体系中,酿酒酵母(Saccharomyces cerevisiae)、库里德阿兹威毕赤酵母(Pichia kudriavzevii)和异常威克汉姆酵母(Wickerhamomyces anomalus)是主要的功能性酵母菌群,对发酵效率和香气物质形成均具有重要贡献。其中,S.cerevisiae以其较强的乙醇发酵性能而被认为是白酒发酵体系中的核心种群,能通过糖酵解及次级代谢途径产生乙醇、较高醇和部分酯类物质,为白酒主体香气提供基础[8]。P.kudriavzevii是一种白酒发酵过程中的优势酵母菌株[9-12],其有利于产生有机酸、酯和酚等风味物质,有利于改善酒体风味,提升白酒的品质[13-14]。此外,W.anomalus对白酒酿造促进酯类物质的产生极为重要。然而,在米香型白酒的发酵体系中,这两类非酿酒酵母(即P.kudriavzevii与W.anomalus)的丰度相对较低[15]。因此,通过调节不同酵母菌群间的比例,尤其是增强P.kudriavzevii与W.anomalus的协同代谢作用,可有效促进酯类物质的合成与平衡分布,从而改善米香型白酒的风味构成与质量稳定性[16-17]。
本文以P.kudriavzevii与W.anomalus作为关键强化菌株,采用高通量测序技术结合发酵过程理化因子的动态变化规律和白酒风味变化,系统分析了微生物群落、理化指标和白酒风味之间的关系,旨在揭示接入P.kudriavzevii与W.anomalus对米香型白酒发酵微生态及风味形成的调控机制,为米香型白酒发酵工艺的优化与风味提升提供理论基础。
1 材料与方法
1.1 实验材料
1.1.1 菌株及活化
本研究使用菌株:库德里阿兹威氏毕赤酵母(Pichia kudriavzevii)JNJY2、异常威克汉姆酵母(Wickerhamomyces anomalus)FJ-3,均来源于实验室前期对清香型白酒体系筛菌保存。酵母使用YPD培养基活化,在30 ℃,200 r/min的条件下使用摇床培养24 h。
1.1.2 强化小曲生产和小曲样本收集
于广西某米香型白酒厂进行强化小曲生产。米香型白酒的小曲以米和油糠为主要原料,原料经粉碎、蒸料、摊凉处理后,接种霉菌和酵母种子液并加水,经成形、培养工序后,通过翻筛、干燥制得散曲;原料经相同前处理后,接种上述散曲并加水,经相同后处理工序后,得到成品曲。基于以上工艺,进行了3组小曲生产。其中对照组是使用传统工艺生产的成品曲(Q1);在传统散曲生产工艺的基础上,接种P.kudriavzevii和W.anomalus(酵母接种终浓度为1×10⁶ 个细胞/g)制得强化散曲(Q2);传统工艺制备Q1时,接种强化散曲(原料∶强化散曲=1∶1 000,质量比),培养制备获得成品曲(Q3)。以上3种小曲(Q1、Q2、Q3)用于后期白酒发酵。
1.1.3 米香型白酒发酵和发酵样本收集
将生产获得的3种曲应用于米香型白酒发酵,其中Q1和Q3直接与原料混合发酵,分别命名为FJ1、FJ3组,Q2由于微生物多样性低,为了正常生产,将Q2与Q1混合发酵,命名为FJ2组。原料(大米)蒸熟摊凉,将冷却后的大米和小曲混合拌匀(原料∶小曲=7∶1 000,质量比)放入无盖的陶坛中搭窝,封口糖化30 h。糖化结束后,加入1.5倍的水,密封进行10 d的发酵。于糖化终点采集各组别糖化样品,分别于发酵第0、1、3、5、10天采集各组别发酵样品。由于固形物在整个发酵阶段均为上浮状态,因此为了保证取样的均一性,对固态发酵物和液态发酵液分别取样后混匀。每次取样时,在每个陶坛内取固态和液态部分中间层的3个固定点收集样品,各取样100 g。将采集的样品放置-80 ℃保藏,以备后续理化指标测定与微生物群落分析。
1.2 主要试剂和设备
1.2.1 试剂
胰蛋白胨、NaCl、酵母粉、琼脂、葡萄糖,上海迈瑞尔生化科技有限公司;NaOH标准溶液、酚酞指示剂、可溶性淀粉、碘液,上海源叶生物科技有限公司;乙酸-乙酸钠缓冲溶液,苏州格瑞特医药技术有限公司;斐林试剂,北京索莱宝科技有限公司;其他试剂均为分析纯。
1.2.2 仪器与设备
7820A气相色谱仪,Agilent公司;Trace1310-ISQ LT气相色谱质谱联用仪、NanoDrop 8000核酸浓度检测仪,赛默飞世尔科技有限公司;Milli-Q超纯水系统,Millipore公司;Mini-Bead-Beater-8细胞破碎仪,上海玉博生物科技有限公司;Avanti J-E冷冻离心机,Beckman Coulter公司;UCHEN LC-DHS-20A水分测定仪,上海力辰仪器科技有限公司。
1.3 理化与风味检测方法
1.3.1 小曲理化指标测定
采用水分测定仪测定小曲水分;酸碱滴定法测定小曲酸度;斐林法测定小曲糖化力;碘比色法测定小曲液化力;发酵力根据出酒计算,以56%(体积分数)酒精出酒率(即100 g大米发酵生成56% vol酒精100 mL)表示发酵力[18]。
1.3.2 风味化合物检测
酒醅前处理:称取10.0 g酒醅,加入25 mL超纯水振荡混匀,在4 ℃冰箱里静置12 h,将混合物浸于冰水混合物中超声波处理,9 000×g,4 ℃离心10 min获取上清液,将上清液用0.22 μm的有机系滤头过膜,待测[19]。
配制100 mg/L的薄荷醇(色谱级乙醇作为溶剂)作为内标物质。在20 mL的顶空瓶中称取3.0 g NaCl,吸取8 mL过滤后的酒醅浸提上清液加入顶空瓶中,加入10 μL上述薄荷醇,用锡箔纸和垫片密封后将盖子旋紧,待测。
色谱检测方法为:顶空固相微萃取结合气相色谱-质谱连用方法(headspace solid-phase microextraction,HS-SPME-GC-MS),使用色谱柱DB-FFAP(60 m×0.25 mm×0.25 μm;Agilent)。具体方法:采用不分流模式,加热器250 ℃,总流量21.42 mL/min[20]。通过半定量方法计算风味化合物的含量[21]。
1.3.3 高通量测序分析
1.3.3.1 样品宏基因组DNA提取
称取7.0 g样品,宏基因组测序所用的DNA按E.Z.N.A.soil DNA kit(Omega Biotek, Norcross, GA)说明书提取。DNA的纯度和浓度分别使用Qubit 2.0(Thermo Fisher Scientific, USA)、Nanodrop One(Thermo Fisher Scientific, USA)进行检测。经过质检和定量后,DNA文库的构建按照Illumina TruSeq DNA Sample Preparation Guide(Illumina, USA)进行。DNA文库的鸟枪测序是在Illumina NovaSeq 6000平台(Illumina, USA)进行。
1.3.3.2 高通量扩增子测序和原始序列处理
为了分析小曲及酒醅微生物群落结构,本研究采用高通量扩增子测序技术。通过引物对ITS3和ITS4扩增真菌的ITS2区[22]。通过引物对338F和806R扩增16S rRNA的V3~V4区[23]。这些引物包含每个样品特有的一组条形码序列。用PCR纯化试剂盒纯化PCR产物,并测定浓度。将条形码PCR产物合并到等物质的量,使用MiSeq台式测序仪进行高通量测序,用于2×300 bp配对末端测序。
通过QIIME(V1.8)软件处理所有从MiSeq生成的原始序列。通过去除不明确碱基> 2、均聚物> 10、引物不匹配、平均质量分数< 20、长度(不包括条形码区域或引物)< 50 bp的序列[24],去除与PCR引物不能完全匹配或具有未分配标签的序列。使用UCHIME软件[25]去除嵌合体。接下来,通过VSEARCH unoise3(V2.8.1)[26]将修整后的序列以97%的相似度聚类为扩增子序列。使用usearch_global函数生成每个样本的特征表。使用SILVA_138.1和UNITE_2023数据库注释将16S和ITS序列注释到属水平。
1.3.4 数据处理与统计分析
主成分分析(principal component analysis,PCA):通过Origin 2025软件对发酵过程不同时间点的微生物属进行PCA并绘图。
共现网络分析:利用生科云平台(https://www.bioincloud.tech/task-meta)揭示发酵过程微生物之间的相互作用关系。
随机森林算法:利用生科云平台(https://www.bioincloud.tech/task-meta)进行计算,对发酵过程风味化合物进行差异风味物质分析。
功能预测分析:采用PICRUST预测微生物群落潜在功能,通过Microsoft Office Excel 2021软件进行数据处理和统计学分析,利用Origin 2025、Adobe Illustrator 2021软件绘图。
显著性分析:通过T检验法进行各组间差异显著性分析并利用Origin 2025、Adobe Illustrator 2021软件绘图。
2 结果与分析
2.1 强化小曲的理化特征和微生物群落结构
为明确强化酵母对白酒发酵过程中小曲理化特性及微生物群落的影响,本文测定了Q1、Q2和Q3三种处理下小曲的水分、酸度、糖化力、液化力、发酵力,以及细菌与真菌的多样性和相对丰度。结果如图1所示。3种处理下小曲的水分含量均在8%~10%,符合生产工艺中水分低于12%的要求(图1-a)。在酸度方面,Q2处理组的酸度为(1.43±0.06) g/kg,显著低于其他组,而Q3处理组的酸度为(3.90±0.24) g/kg,显著高于Q2组(图1-b)。糖化力结果显示,Q2处理组的小曲糖化力高达(125.50±4.49) U,远高于其他两组(图1-c)。如图1-d所示,Q1处理组的液化力为(0.28±0.05) U,高于其他两组。发酵力方面,各组间差异不显著,发酵力为72.93~74.24 U(图1-e)。
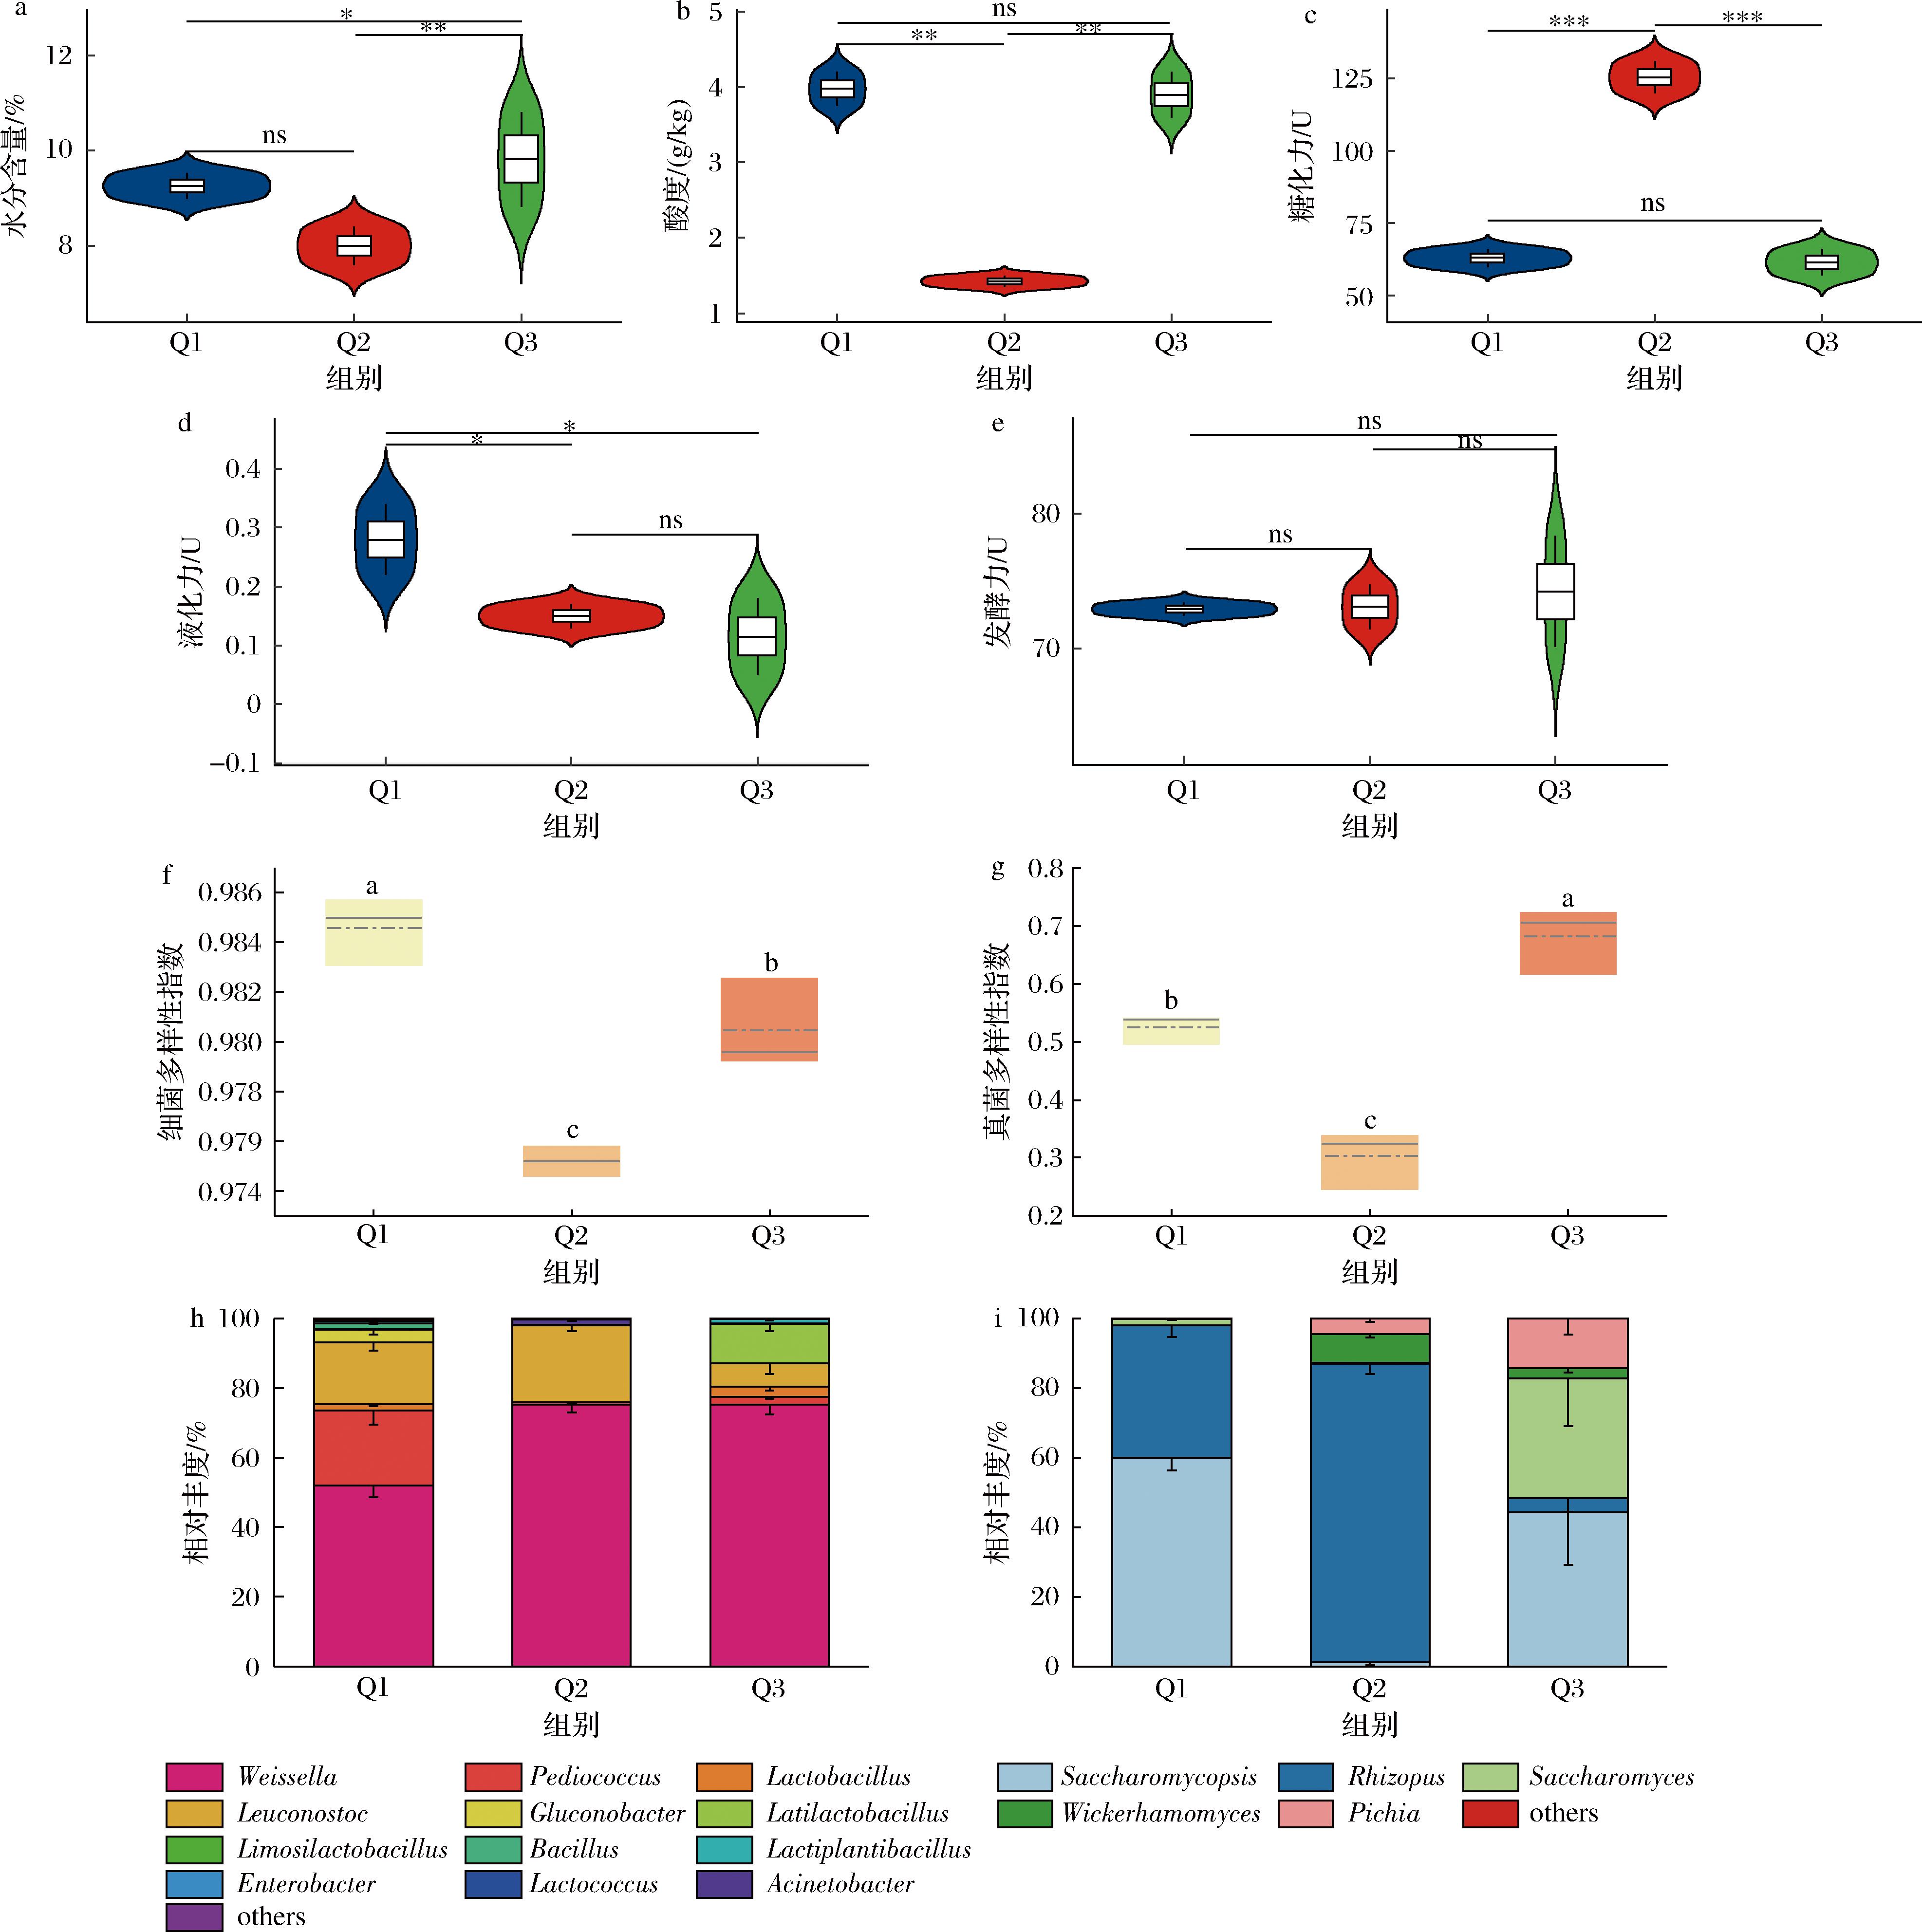
a-小曲水分含量;b-小曲酸度;c-小曲糖化力;d-小曲液化力;e-小曲发酵力;f-小曲细菌多样性分析;g-小曲真菌多样性分析;h-小曲细菌相对丰度;i-小曲真菌相对丰度
图1 接种微生物对小曲理化和微生物群落的影响
Fig.1 Effect of microbial inoculation on the physicochemical properties and microbial communities of Xiaoqu
注:a~e中“ns”表示差异不显著,“*”表示在P<0.05水平的差异显著性,“**”表示在P<0.01水平的差异显著性,“***”表示在P<0.001水平的差异显著性;f和g中不同字母表示差异显著性,平均相对丰度<1%的属被归类为“others”(下同)。
微生物多样性分析结果表明(图1-f、图1-g),添加强化酵母的Q2处理组中细菌和真菌多样性均显著低于常规生产小曲Q1;以强化散曲作为发酵剂生产的Q3小曲,其细菌多样性显著低于Q1但高于Q2(图1-f),真菌多样性显著高于Q1和Q2(图1-g)。进一步分析小曲中微生物组成发现,Q1中的优势细菌属(平均相对丰度>1%)为魏斯氏菌属(Weissella,52.0%)、片球菌属(Pediococcus,21.6%)、明串珠菌属(Leuconostoc,17.7%)、葡糖杆菌属(Gluconobacter,3.8%)、乳酸杆菌属(Lactobacillus,1.8%)和Bacillus(1.6%)(图1-h);Q1中的优势真菌属(平均相对丰度>1%)为复膜孢酵母属(Saccharomycopsis,60.0%)、根霉属(Rhizopus,37.9%)和酵母属(Saccharomyces,2.0%)(图1-i)。Q2中的优势细菌属(平均相对丰度>1%)为Weissella(75.2%)、Leuconostoc(22.1%)和不动杆菌属(Acinetobacter,1.4%)(图1-h);Q2中的优势真菌属(平均相对丰度>1%)为Rhizopus(85.8%)、Wickerhamomyces(8.3%)、Pichia(4.5%)和Saccharomycopsis(1.1%)(图1-i)。Q3中的优势细菌属(平均相对丰度>1%)为Weissella(75.2%)、广布乳杆菌属(Latilactobacillus,11.3%)、Leuconostoc(6.8%)、Lactobacillus(3.1%)、Pediococcus(2.2%)和乳植杆菌属(Lactiplantibacillus,1.3%)(图1-h);Q3中的优势真菌属(平均相对丰度>1%)为Saccharomycopsis(44.4%)、Saccharomyces(34.3%)、Pichia(14.4%)、Rhizopus(4.0%)和Wickerhamomyces(2.9%)(图1-i)。
2.2 强化小曲对白酒发酵过程微生物群落结构的影响
对FJ1、FJ2、FJ3发酵组不同阶段的微生物组成的优势菌属(平均相对丰度>1%)进行分析。FJ1初始发酵中优势细菌属(平均相对丰度>1%)为Pediococcus(64.9%)、Weissella(22.2%)、Leuconostoc(8.0%)和Gluconobacter(1.8%)。FJ2初始发酵中优势细菌属(平均相对丰度>1%)为Pediococcus(61.5%)、Weissella(23.3%)、Leuconostoc(10.0%)和Gluconobacter(2.1%)。FJ3初始发酵中优势细菌属(平均相对丰度>1%)为Weissella(55.7%)、Pediococcus(20.7%)、Leuconostoc(13.6%)、Latilactobacillus(7.5%)和Lactobacillus(1.3%)。Pediococcus的相对丰度在FJ1、FJ2和FJ3发酵过程中下降。Weissella的相对丰度在FJ1和FJ2白酒发酵过程中呈下降趋势;在FJ3发酵过程,第1天从55.7%增加至87.7%,从第1天到第10天下降至45.2%。Leuconostoc的相对丰度在FJ2、FJ3发酵过程下降;FJ1从第3天10.5%下降至2.2%。Gluconobacter的相对丰度在FJ1和FJ2发酵过程,第0天到第1天增加,第1天直至发酵结束下降。Lactobacillus和Latilactobacillus为FJ3的独特优势细菌属,Lactobacillus的相对丰度从1.3%增加至发酵结束48.8%;Latilactobacillus的相对丰度从7.5%下降至发酵结束0.9%,至第10天不再为优势细菌属(图2-a)。FJ1初始发酵中优势真菌属(平均相对丰度>1%)为Saccharomycopsis(87.4%)、Saccharomyces(8.2%)和Rhizopus(3.9%)。FJ2初始发酵中优势真菌属(平均相对丰度>1%)为Saccharomycopsis(61.1%)、Rhizopus(16.3%)、Saccharomyces(10.7%)、Wickerhamomyces(10.7%)和Pichia(4.1%)。FJ3初始发酵中优势真菌属(平均相对丰度>1%)为Saccharomyces(36.4%)、Saccharomycopsis(18.4%)、Pichia(13.1%)、Wickerhamomyces(6.2%)和Rhizopus(2.6%)。Saccharomycopsis的相对丰度在FJ1发酵过程中呈下降趋势;在FJ2和FJ3发酵过程中先增加再下降,增加至第3天82.3%和78.5%,从第3天到发酵结束下降至76.6%和46.3%。Saccharomyces的相对丰度在FJ1、FJ2和FJ3发酵过程中,第0天至第1天下降,第1天至发酵结束增加。Rhizopus的相对丰度在FJ1和FJ2发酵过程中,先增加后降低至3.8%和7.5%;在FJ3发酵过程中,第0天到第1天增加至25.5%,第1天到第3天下降至9.1%,第3天至发酵结束增加为13.5%。Wickerhamomyces和Pichia为FJ2和FJ3的独特优势真菌属。Wickerhamomyces和Pichia的相对丰度在FJ2和FJ3初始发酵阶段最高,在FJ2发酵过程中从第1天到发酵结束均<1%;Wickerhamomyces相对丰度在FJ3发酵过程中,从第1天到第5天均<1%,第5天到发酵结束增加至1.0%;Pichia相对丰度在FJ3发酵过程中先降低后增加,从初始发酵到第3天降低至1.3%,从第3天到发酵结束增加至3.1%(图2-b)。综上所述,强化P.kudriavzevii和W.anomalus改变了发酵体系中微生物群落的结构与演替特征。
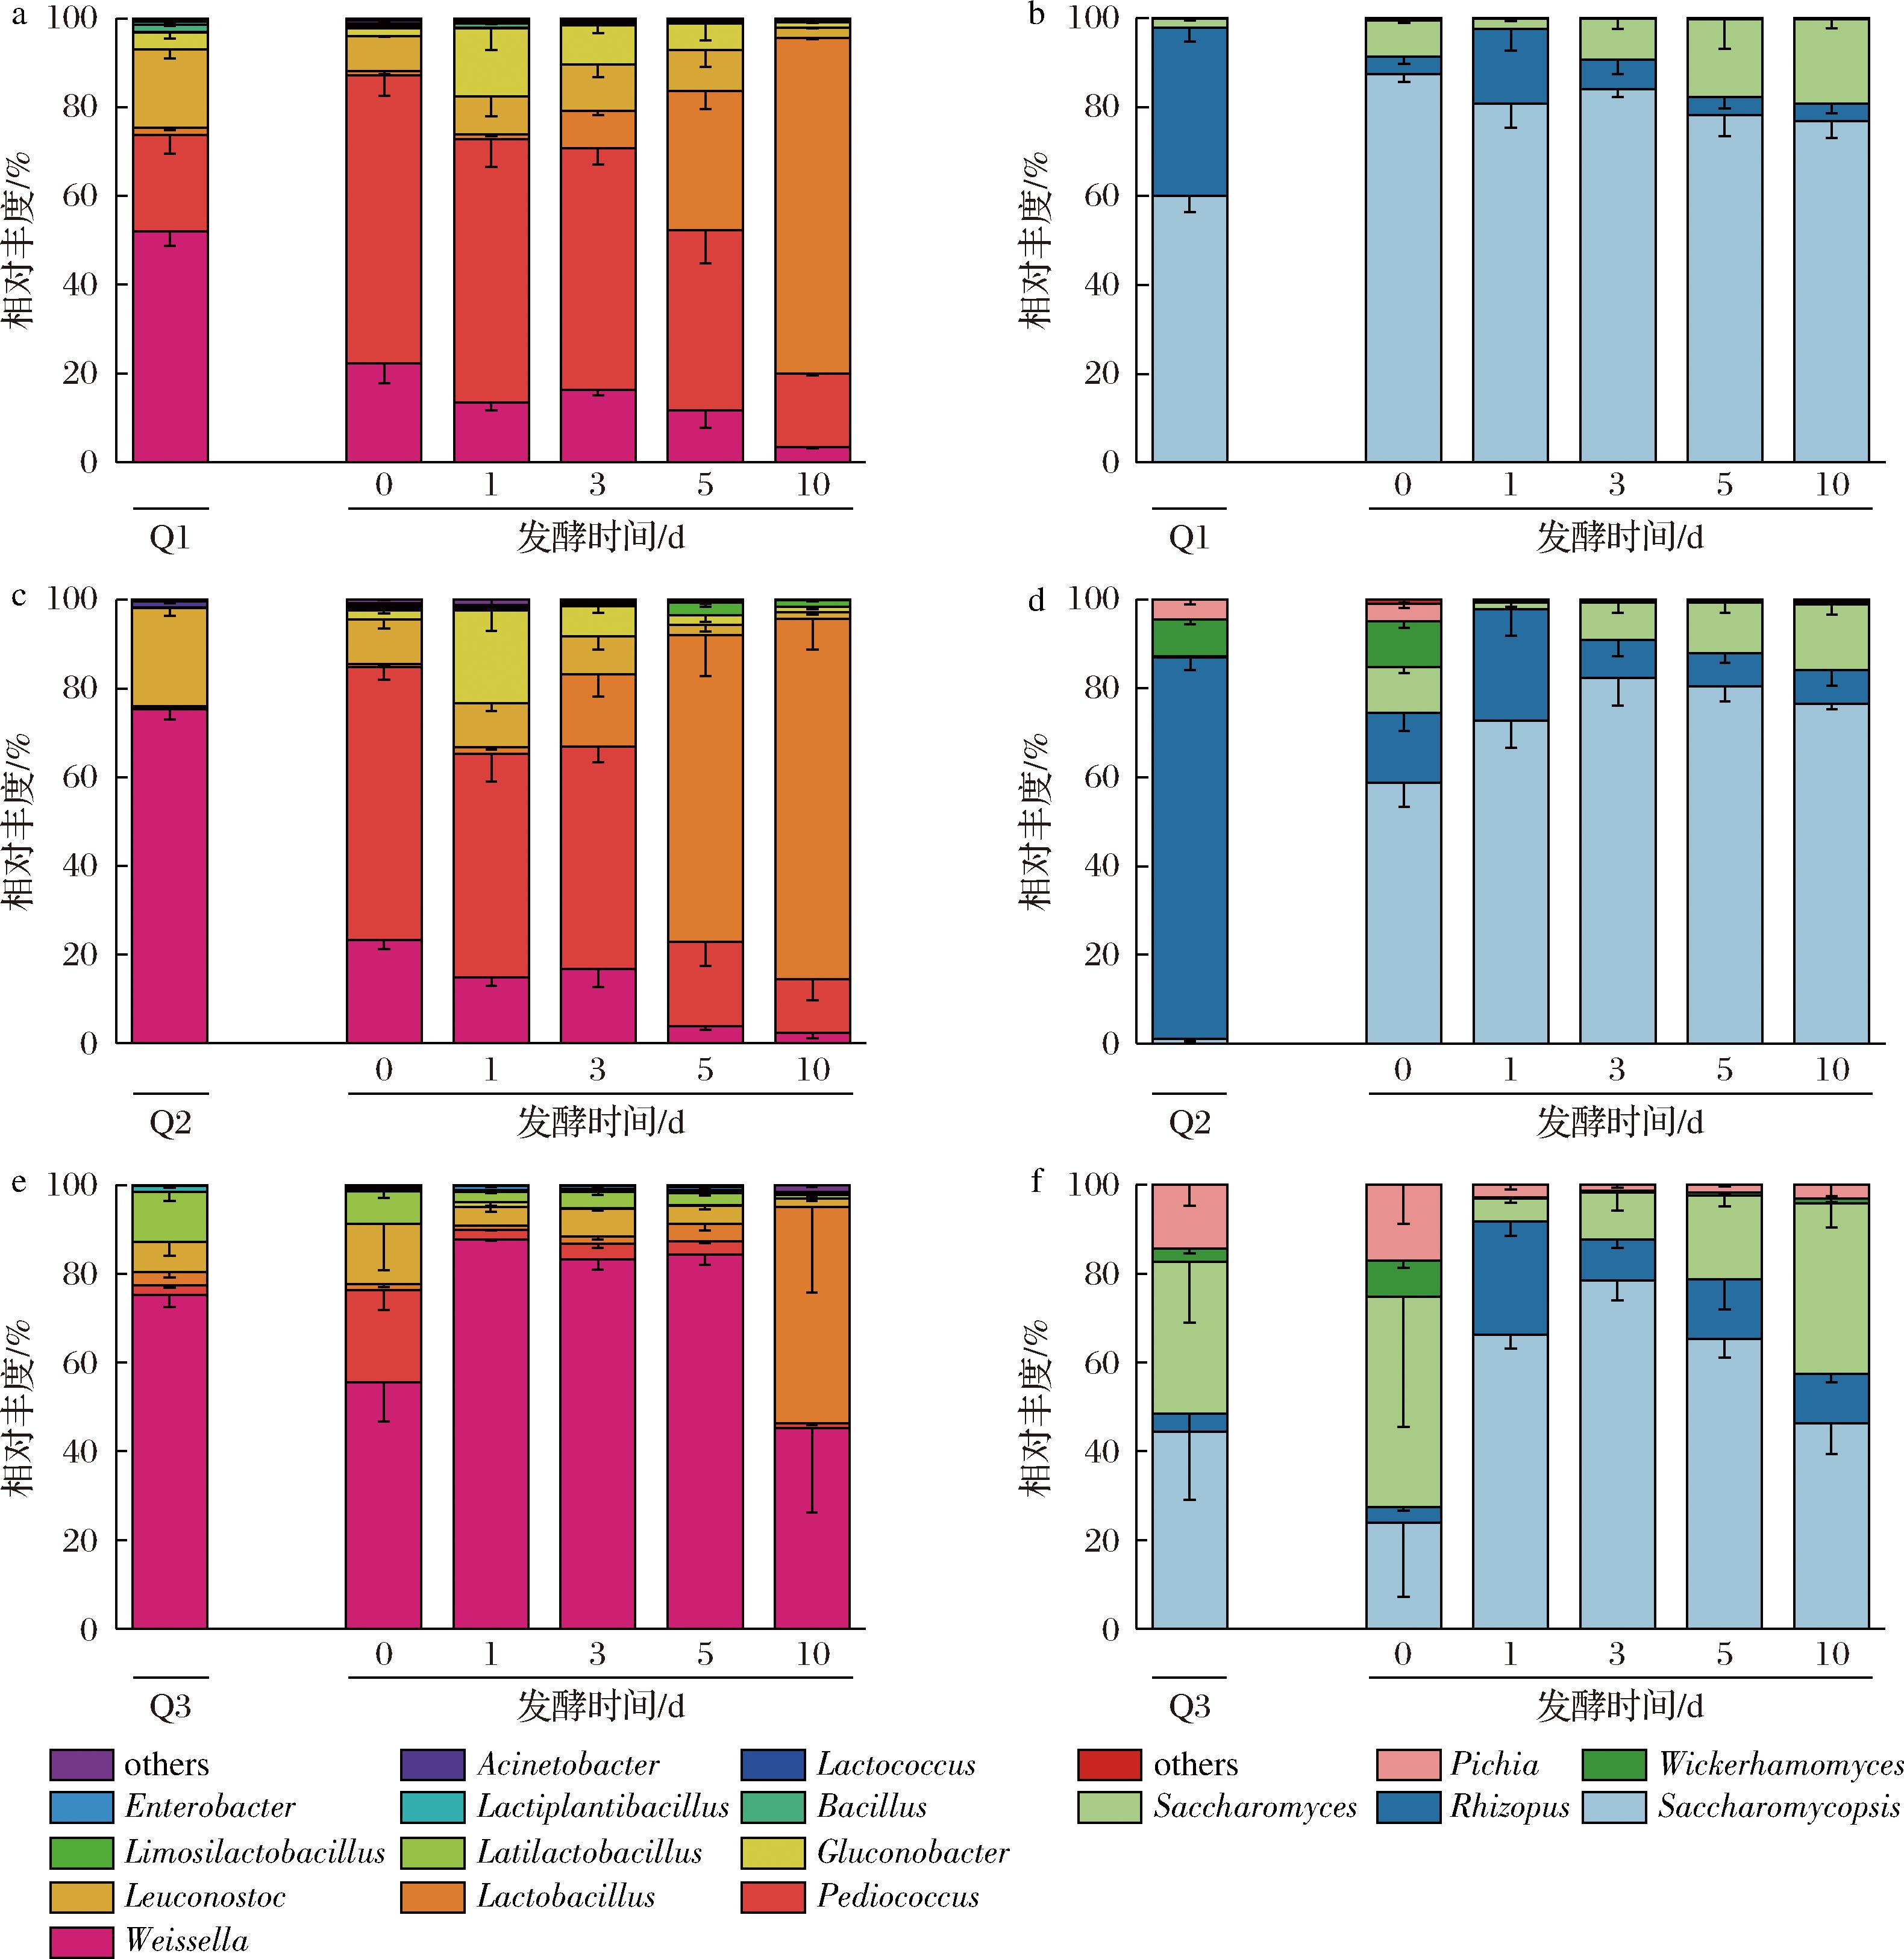
a-FJ1的细菌相对丰度;b-FJ1的真菌相对丰度;c-FJ2的细菌相对丰度;d-FJ2的真菌相对丰度;e-FJ3的细菌相对丰度;f-FJ3的真菌相对丰度
图2 白酒发酵过程微生物群落结构
Fig.2 Relative abundance of microbial genus during Baijiu fermentation
2.3 强化小曲对白酒发酵过程多样性及共现网络的影响
将3种小曲应用于白酒发酵,并对发酵过程中的细菌和真菌多样性及群落结构进行了分析。在细菌多样性方面,FJ1和FJ2均呈现“先增后降”的变化趋势。具体而言,FJ1在发酵0~5 d期间多样性逐渐升高,5 d后开始下降,最终降至多样性指数为(0.971±0.001);FJ2在发酵0~3 d多样性增加,3 d后逐渐下降,并在发酵第10天达到整个发酵周期多样性指数的最低值(0.965±0.005);而FJ3在发酵第1天出现短暂下降后,多样性持续上升,至第10天达到最高值(0.977±0.003)(图3-a)。真菌多样性方面,FJ1在整个发酵过程中多样性指数从(0.247±0.023)持续升高至(0.417±0.045);FJ2在发酵1~3 d显著下降,自第3天起转为递增趋势,并在第10天多样性指数达到(0.416±0.015);FJ3同样在发酵1~3 d下降,但3~10 d持续上升,于第10天多样性指数达到最高值(0.665±0.024)(图3-b)。进一步的微生物群落结构PCA结果表明,FJ3也表现出明显区别与对照组(FJ1)的微生物群落结构(图3-c~图3-d),这些结果说明,强化小曲改变了发酵过程的微生物群落结构,对白酒发酵过程中的微生物多样性具有显著影响。

a-发酵过程细菌多样性分析;b-发酵过程真菌多样性分析;c-细菌群落的PCA;d-真菌群落的PCA;e-FJ1微生物共现网络分析;f-FJ2微生物共现网络分析;g-FJ3微生物共现网络分析
图3 白酒发酵过程微生物的多样性、PCA和共现网络分析
Fig.3 The diversity, PCA and co-occurrence network analysis of microorganisms during Baijiu fermentation
注:e~g中绿色和红色的节点分别表示发酵过程中原有菌属和强化菌属,连线粗细表示相关性大小,绿色的连线表示正相关关系,红色的连线表示负相关关系。
通过微生物共现网络分析,在FJ1中观测到9个节点和15条边,Saccharomycopsis和Saccharomyces是网络的核心节点;FJ2和FJ3处理组中都观察到12个节点,并分别有18、27条边,Wickerhamomyces与Pichia之间形成的特定互作网络也参与了相互作用(图3-e~图3-g),这种酵母属间的互连关系间接证明了Wickerhamomyces和Pichia的添加显著提升了发酵体系的酵母多样性。
2.4 强化小曲对白酒风味化合物的影响
本研究系统分析了FJ1、FJ2、FJ3三种处理条件下白酒发酵过程中的风味化合物组成与微生物群落结构特征。通过差异风味物质分析发现:FJ2中十二内酯、壬醛、1-辛烯-3-醇、4-乙烯基愈创木酚、乙酸异戊酯、1-辛烯-3-酮、苯甲醛、异佛尔酮、癸醛、乙酸苯乙酯、棕榈酸等11种风味物质含量均低于FJ1和FJ3处理组,其中3种是酯类物质;而FJ3中十二内酯、乙酸乙酯、壬醛、1-辛烯-3-醇、4-乙烯基愈创木酚、乙酸异戊酯、乙酸异丁酯、苯甲醛、异佛尔酮、癸醛、乙酸苯乙酯、棕榈酸等12种风味物质含量均显著高于FJ1和FJ2处理组,其中5种是酯类物质(图4-a)。酯类是差异最多的风味物质类型,并且在FJ3组表现出最高的含量。使用PICRUSt2预测了微生物群落的酯类合成功能,发现在发酵结束(10 d)时,FJ3组的羧酸酯酶(EC 3.1.1.1)相对丰度显著高于FJ1和FJ2(P<0.01)。在发酵过程中Saccharomyces贡献了72.1%的羧酸酯酶,是主要生产者,同时也检测到了来自Pichia和Wickerhamomyces的羧酸酯酶,其中Pichia贡献了0.2%,Wickerhamomyces贡献了1.6%(图4-b)。此外FJ1组的芳基醇脱氢酶(EC 1.1.1.90)丰度高于FJ2和FJ3,而Pediococcus贡献了40.7%的芳基醇脱氢酶,是主要生产者(图4-c)。综上,FJ3中强化酵母的添加增加了发酵过程酯类物质代谢功能,这可能与酵母多样性的提高有关;而在FJ2组中,由于散曲的微生物多样性较低,Wickerhamomyces和Pichia进一步降低了部分原有菌群的优势,如Pediococcus(图2-a),导致FJ2整体风味物质含量偏低。

a-白酒发酵差异风味化合物;b-不同实验组在发酵中酯类物质合成基因的丰度变化及参与合成的微生物;c-不同实验组在发酵中苯乙醇合成基因的丰度变化及参与合成的微生物
图4 白酒发酵中风味化合物及其生物合成分析
Fig.4 Analysis of flavor compounds and biosynthesis pathways during Baijiu fermentation
3 结论与讨论
本研究综合运用高通量测序技术并结合统计学分析方法,通过在小曲制备过程中强化功能酵母P.kudriavzevii与W.anomalus,系统分析了其对白酒发酵过程的理化特征、微生物群落结构及风味物质生成的影响。结果表明,强化小曲在保持传统理化指标稳定的基础上,显著提升了真菌多样性与酵母类群的相对丰度,优化了小曲及发酵体系的微生物结构。发酵过程中,强化组(FJ3)中细菌与真菌群落演替更为平稳,微生物多样性持续上升,表明强化小曲改善了发酵过程的群落结构稳定性。功能预测与差异风味分析进一步揭示,强化小曲能够促进酯类、醛类和芳香族化合物的合成,提高发酵体系的代谢活性。
本研究所选用的2种酵母菌株在白酒发酵体系中展现出更为突出的产香潜力。P.kudriavzevii是浓香型白酒糟醅中常见的优良产香菌,能够高效利用碳源与氮源生成多种酯类与醇类化合物,赋予白酒独特的果香与花香特征,并增强酒体的层次感与辨识度[27]。此外,W.anomalus在酿酒微生物体系中的应用已被广泛报道,其可促进己酸乙酯和乙酸乙酯等关键风味物质的形成[28-30]。本研究将上述2种酵母菌株联合强化至米香型白酒小曲中,显著提高了酵母多样性及酯类化合物含量,体现了多酵母协同作用在白酒发酵体系优化中的潜在优势,并为小曲型白酒的功能化改造提供了新的思路。
从代谢机制角度看,关键酶系的活性在风味物质合成中具有决定性作用。酯类化合物的生成主要依赖羧酸酯酶(EC 3.1.1.1)的催化。本研究的功能预测结果显示,强化加入的P.kudriavzevii和W.anomalus显著增强了发酵体系的总酶活性水平(增强了15.4%),使FJ3发酵体系中酯类物质(如乙酸苯乙酯、异戊酸异戊酯等)含量显著高于对照组。与环境因子调控(如温控或pH调控)相比,通过功能酵母重塑发酵体系酶学特征的策略更加精准高效,可促进对白酒风味代谢的定向调控。
综上,通过对比不同发酵组酒醅的优势菌群差异可知,不同微生物类群对白酒发酵工艺具有显著影响。强化P.kudriavzevii与W.anomalus不仅显著改变了白酒发酵过程中的优势菌群构成,还调控了群落的演替进程;而这种菌群结构及演替的变化通过影响关键酶系活性和风味物质代谢途径,最终促进了酯类与芳香族化合物的生成,提升了米香型白酒的品质。该研究结果为功能酵母在米香型白酒酿造中的应用提供了指导。
[1] 余洁瑜, 刘功良, 白卫东, 等. 米香型白酒的研究进展[J]. 中国酿造, 2021, 40(1):29-32.Yu J Y, Liu G L, Bai W D, et al. Research progress on rice-flavor Baijiu[J]. China Brewing, 2021, 40(1):29-32.
[2] Hao F, Tan Y W, Lyu X B, et al. Microbial community succession and its environment driving factors during initial fermentation of Maotai-flavor Baijiu[J]. Frontiers in Microbiology, 2021, 12:669201.
[3] Jin Y, Li D Y, Ai M, et al. Correlation between volatile profiles and microbial communities: A metabonomic approach to study Jiang-flavor liquor Daqu[J]. Food Research International, 2019, 121:422-432.
[4] Ye H, Wang J, Shi J, et al. Automatic and intelligent technologies of solid-state fermentation process of Baijiu production: Applications, challenges, and prospects[J]. Foods, 2021, 10(3):680.
[5] Yan Z, Zheng X W, Chen J Y, et al. Effect of different Bacillus strains on the profile of organic acids in a liquid culture of Daqu[J]. Journal of the Institute of Brewing, 2013, 119(1-2):78-83.
[6] Guo J H, Sun L H, Guo H W, et al. Effect of cellulase-producing bacteria on fungi community structure and ester generation in Chinese liquor fermenting grains[J]. Journal of the American Society of Brewing Chemists, 2018, 76(2):130-140.
[7] Zhang P P, Liu Y B, Li H D, et al. Strategies and challenges of microbiota regulation in Baijiu brewing[J]. Foods, 2024, 13(12):1954.
[8] Tang J, Liu Y C, Lin B, et al. Effects of ultra-long fermentation time on the microbial community and flavor components of light-flavor Xiaoqu Baijiu based on fermentation tanks[J]. World Journal of Microbiology and Biotechnology, 2021, 38(1):3.
[9] 贾丽艳, 张丽, 李惠源, 等. 果香风味导向的库德毕赤酵母FJZ的分离鉴定及生物学特性研究[J]. 中国食品学报, 2021, 21(1):276-282.Jia L Y, Zhang L, Li H Y, et al. The screening and identification of Pichia kudriavzevi FJZ by flavor-oriented technology and it’s biological characteristics[J]. Journal of Chinese Institute of Food Science and Technology, 2021, 21(1):276-282.
[10] 王德培, 胡阳, 焦富. 库德里阿兹威氏毕赤酵母在发酵工业中的研究进展[J]. 酿酒科技, 2021(6):95-101.Wang D P, Hu Y, Jiao F. Research progress in the application of Pichia kudriavzevii in industrial fermentation[J]. Liquor-Making Science &Technology, 2021(6):95-101.
[11] Alonso-Del-Real J, Lairón-Peris M, Barrio E, et al. Effect of temperature on the prevalence of Saccharomyces non cerevisiae species against a S. cerevisiae wine strain in wine fermentation: Competition, physiological fitness, and influence in final wine composition[J]. Frontiers in Microbiology, 2017, 8:150.
[12] 吕想, 高甜甜, 刘伟, 等. 基于GC-IMS分析非酿酒酵母与酿酒酵母混合发酵脐橙酒挥发性香气成分[J]. 食品工业科技, 2023, 44(17):139-148.Lyu X, Gao T T, Liu W, et al. Analysis of volatile aroma components of navel orange wine produced by mixed fermentation of non Saccharomyces cerevisiae and Saccharomyces cerevisiae based on GC-IMS[J]. Science and Technology of Food Industry, 2023, 44(17):139-148.
[13] 卜光明, 周化斌, 周茂洪, 等. 酿造酒中非酿酒酵母的研究进展[J]. 食品工业科技, 2019, 40(14):346-352.Bu G M, Zhou H B, Zhou M H, et al. Research progress on the non-Saccharomyces in the brewing wine fermentation[J]. Science and Technology of Food Industry, 2019, 40(14):346-352.
[14] 赵志军, 王瑞卿, 刘延波, 等. 酿酒糟醅中生香酵母的筛选及培养条件[J]. 食品与生物技术学报, 2020, 39(9):61-67.Zhao Z J, Wang R Q, Liu Y B, et al. Screening of aroma-producing yeast in distiller’s grains and optimization of culture conditions[J]. Journal of Food Science and Biotechnology, 2020, 39(9):61-67.
[15] 王云, 班世博, 吴群, 等. 米香型白酒酿造过程微生物群落及其代谢功能特征[J]. 食品与发酵工业, 2024, 50(24):151-158.Wang Y, Ban S B, Wu Q, et al. Characteristics of microbial communities and metabolic functions during brewing of rice-flavor Baijiu[J]. Food and Fermentation Industries, 2024, 50(24):151-158.
[16] 曹玉发, 孙怡辰, 魏轩, 等. 3个年份浓香型白酒香气成分比较研究[J]. 食品安全质量检测学报, 2021, 12(2):769-779.Cao Y F, Sun Y C, Wei X, et al. Investigation on the aroma compounds of strong-aroma-type Baijiu in 3 different aging years[J]. Journal of Food Safety &Quality, 2021, 12(2):769-779.
[17] 胡晓龙, 余苗, 王康丽, 等. 浓香型白酒窖泥微生物群落多样性及理化因素对其影响[J]. 食品研究与开发, 2021, 42(2):178-185; 204.Hu X L, Yu M, Wang K L, et al. Diversity of microbial community and its correlation with physicochemical factors in Luzhou-flavor liquor pit mud[J]. Food Research and Development, 2021, 42(2):178-185; 204.
[18] 沈怡方. 白酒生产技术全书[M]. 第三版. 北京: 中国轻工业出版社, 2005.Shen Y F. Encyclopedia of Baijiu production technology[M]. 3rd ed. Beijing: China Light Industry Press, 2005.
[19] Wang Z, Ji X A, Wang S L, et al. Sugar profile regulates the microbial metabolic diversity in Chinese Baijiu fermentation[J]. International Journal of Food Microbiology, 2021, 359:109426.
[20] Wang P, Wu Q, Jiang X J, et al. Bacillus licheniformis affects the microbial community and metabolic profile in the spontaneous fermentation of Daqu starter for Chinese liquor making[J]. International Journal of Food Microbiology, 2017, 250:59-67.
[21] Mo X L, Fan W L, Xu Y. Changes in volatile compounds of Chinese rice wine wheat Qu during fermentation and storage[J]. Journal of the Institute of Brewing, 2009, 115(4):300-307.
[22] Levin R A, Myers N R, Bohs L. Phylogenetic relationships among the “spiny solanums” (Solanum Subgenus Leptostemonum, Solanaceae)[J]. American Journal of Botany, 2006, 93(1):157-169.
[23] Zhang X L, Zhang R N, Jiang Z W, et al. Biodiversity of the bacteria closely associated with the toxigenic dinoflagellate, Alexandrium minutum, and screening of its toxigenic bacteria strains[J]. Toxicon, 2019, 158: S6.
[24] Wang S L, Wu Q, Nie Y, et al. Construction of synthetic microbiota for reproducible flavor compound metabolism in Chinese light-aroma-type liquor produced by solid-state fermentation[J]. Applied and Environmental Microbiology, 2019, 85(10): e03090-e03018.
[25] Edgar R C, Haas B J, Clemente J C, et al. UCHIME improves sensitivity and speed of chimera detection[J]. Bioinformatics, 2011, 27(16):2194-2200.
[26] Rognes T, Flouri T, Nichols B, et al. VSEARCH: A versatile open source tool for metagenomics[J]. PeerJ, 2016, 4: e2584.
[27] Deng N, Du H, Xu Y. Cooperative response of Pichia kudriavzevii and Saccharomyces cerevisiae to lactic acid stress in Baijiu fermentation[J]. Journal of Agricultural and Food Chemistry, 2020, 68(17):4903-4911.
[28] 石馨, 惠明, 田青, 等. 异常威客汉姆酵母产酯酶培养基优化及发酵液香气物质分析[J]. 发酵科技通讯, 2021, 50(3):149-155.Shi X, Hui M, Tian Q, et al. Optimization of esterase production medium and analysis of aromatic substances in the fermented broth by Wickerhamomyces anomalus[J]. Bulletin of Fermentation Science and Technology, 2021, 50(3):149-155.
[29] 明红梅, 周健, 陈蒙恩, 等. 大曲中异常威克汉姆酵母发酵产苯乙醇的条件优化[J]. 湖北农业科学, 2015, 54(14):3492-3496.Ming H M, Zhou J, Chen M E, et al. Optimization of phenylethanol fermentation conditions of Wickerhamomyces anomalus from Daqu by response surface methodology[J]. Hubei Agricultural Sciences, 2015, 54(14):3492-3496.
[30] 刘晓柱, 黎华, 李银凤, 等. 接种异常威克汉姆酵母对空心李果酒理化特性及香气组分的影响[J]. 食品科技, 2020, 45(11):21-27.Liu X Z, Li H, Li Y F, et al. Effects of inoculation Wickerhamomyces anomalus on the physicochemical property and aroma profile of Prunus salicina Lindl. Cv ‘kongxinli’ fruit wine[J]. Food Science and Technology, 2020, 45(11):21-27.