酱香型白酒历史积淀深厚,其早期雏形——“枸酱”在汉代文献与清代陈晋熙诗句中均印证了其(枸酱)早在汉代便受宫廷青睐。酱香风味的独特性根植于其高度复杂且依赖人工经验的‘12987’生产工艺体系,该体系包含‘挖、切、摊、破、扫、刮’等精细操作流程[1]。这种对工艺细节和轮次差异的极致要求,在推动独有风味的同时,也构成了向自动化转型的壁垒。这也是酱香型白酒的机械化生产转型晚于其他香型白酒的主要原因[2]。
当前,为推进酱香白酒酿造向机械化、智能化发展,相关研究围绕机械化和传统工艺生产的特征进行了初步的探究,Hu等[3]通过对比传统与机械工艺制作的小曲白酒发现,使用机械工艺制作的糟醅中酵母菌和细菌数量显著高于传统工艺,Wu等[4]对比了酱香型白酒机械化车间和传统人工车间堆积发酵时期的糟醅理化指标与微生物群落,结果表明,机械化车间的优势微生物菌属与理化指标间的相互作用关系有别于传统人工车间,表明传统酿造工艺的机械化生产存在改变酿造过程中糟醅微生态的潜在风险,但是否会进一步对酒质产生影响及其影响机制还有待进一步深入研究。因此,在智能化酿造新型发酵体系下,如何使用自动化机械设备“还原”传统酱香型白酒复杂的生产工艺更大程度继承人工生产模式下的微生物发酵体系,提高基酒产品质量,仍是制约酱香型白酒智能化酿造技术推广的主要问题[5]。
微生物是白酒酿造中的“生产者”,白酒中绝大部分香味物质的来源都可追溯至发酵过程中微生物的代谢作用[6]。但酱香型白酒酿造周期长、工艺操作复杂,微生物群落间的互作效应显著,Wu等[7]便开启了对酱香型白酒糟醅微生物群落的研究。近年,Wei等[8]揭示了酱香型白酒中高级醇的代谢和组装过程,而Yang等[9-10]揭示了酱香型白酒在堆积发酵和窖池发酵过程中微生物群落的时空异质性。但目前的研究对酱香型白酒酿造过程的关键微生物群的物种和功能解析尚不明晰。
摊晾是酱香型白酒生产环节中的重要过程,其能降低糟醅在窖池发酵中累计的有机酸含量,减少糟醅的水分、使糟醅富集环境中微生物[11]。研究表明,不同的摊晾场地面积[12]、摊晾设备等都会对白酒的产量和糟醅微生物群落特征造成影响[13]。而酱香型白酒因其复杂的工艺操作流程、开放式的生产环境、复杂的微生物群落相互作用,导致其在机械生产过程中难以还原传统工艺的全部特征[14]。为此,本研究旨在通过对比往复式地面机械摊晾(以下简称机械摊晾)和传统工艺摊晾条件下糟醅的微生物差异阐明目前机械摊晾存在的不足,为进一步改进机械化摊晾方式以更好地还原传统工艺,最大化保留酱香型白酒的传统风味提供理论指导。
1 材料与方法
1.1 材料与仪器
1.1.1 材料与试剂
样品:本研究糟醅样品均由某酱香型白酒生产企业提供,样品均为造沙轮次同一生产车间内的糟醅;其中机械摊晾通过摊晾撒曲拌料一体机实现(电子版增强出版附图1,https://doiorg/10.13995/jcnki.11-1802/ts.045185,下同),而传统摊晾为传统生产工艺操作。采集样品时以出甑后的无菌糟醅摊晾拌曲为起点,共设置了摊晾、堆积、下窖、窖池发酵和出窖5个环节监测微生物在不同阶段的时序变化。为保证该项研究具有统计学意义,对上述的各个分组均采集5份样品进行后续检测。
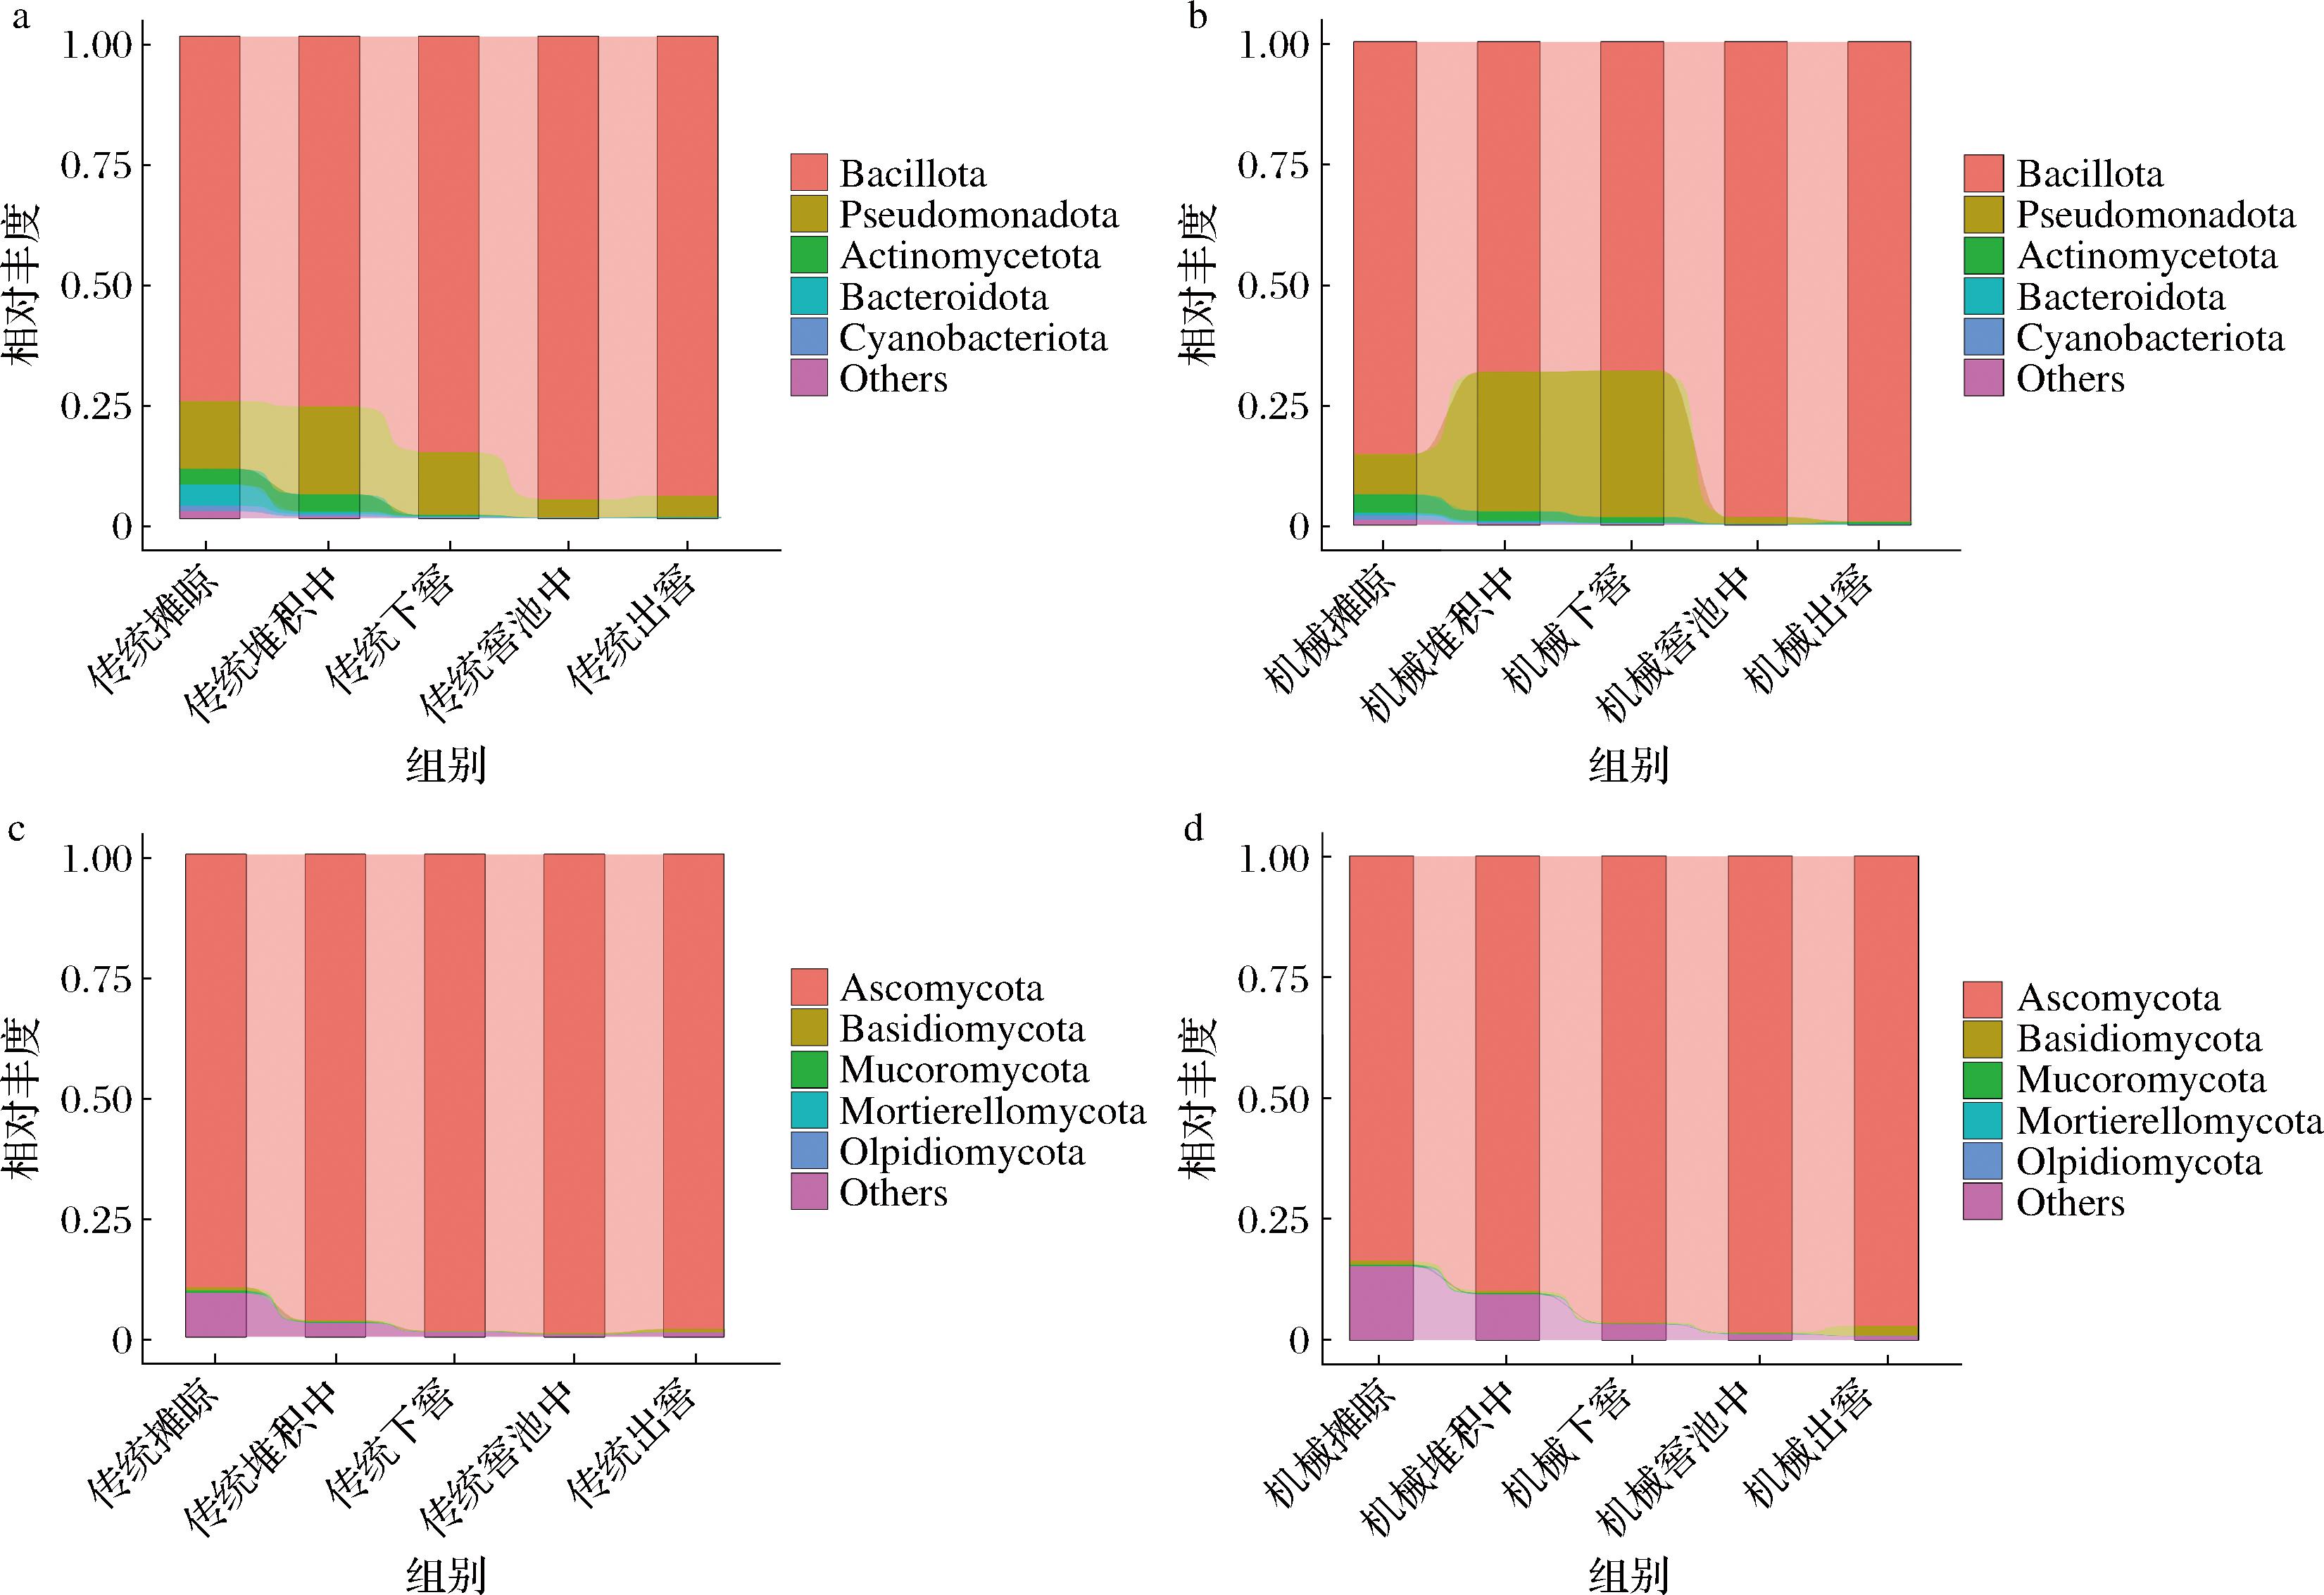
a-传统摊晾糟醅细菌;b-机械摊晾糟醅细菌;c-传统摊晾糟醅真菌;d-机械摊晾糟醅真菌
图1 机械与传统摊晾方法处理的糟醅在不同发酵阶段的细菌和真菌相对丰度排名前5的菌门
Fig.1 Top five bacterial and fungal phyla by relative abundance in Zaopei by mechanical and traditional airing methods at different fermentation stages
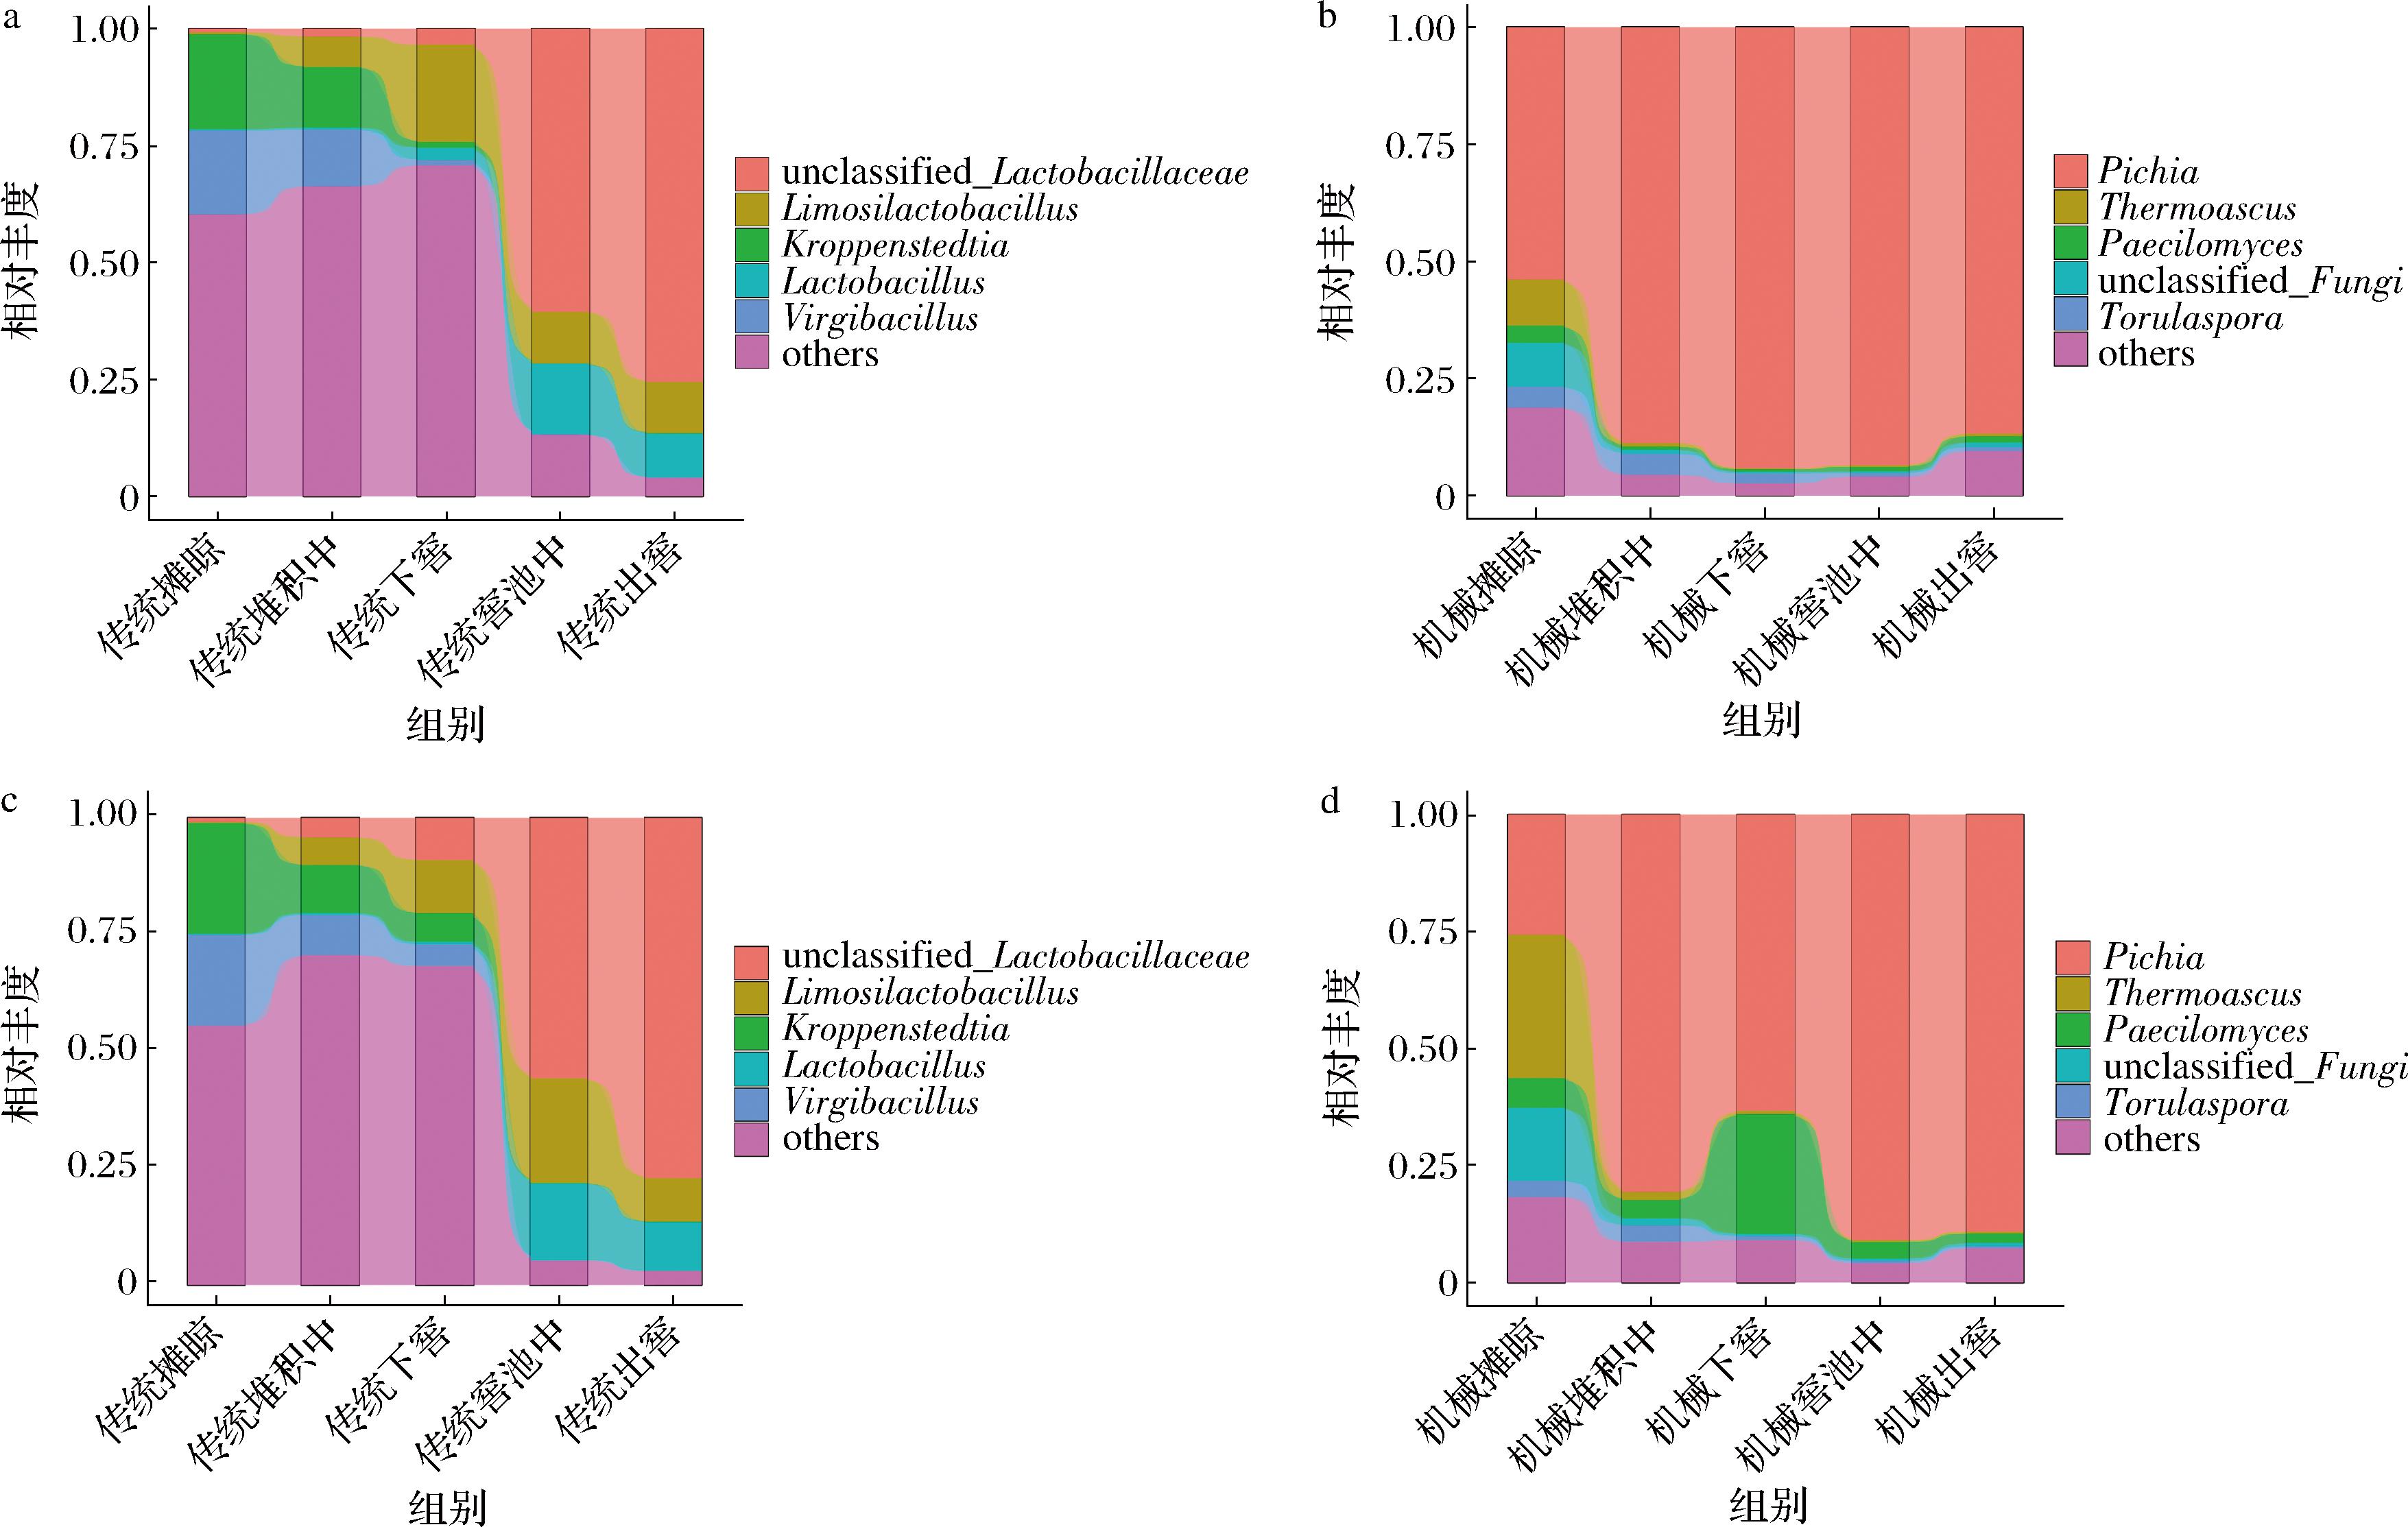
a-传统摊晾糟醅细菌;b-机械摊晾糟醅细菌;c-传统摊晾糟醅真菌;d-机械摊晾糟醅真菌
图2 机械与传统摊晾方法处理的糟醅在不同发酵阶段的细菌和真菌相对丰度前5的菌属
Fig.2 Top five bacterial and fungal genus by relative abundance in Zaopei by mechanical and traditional airing methods at different fermentation stages
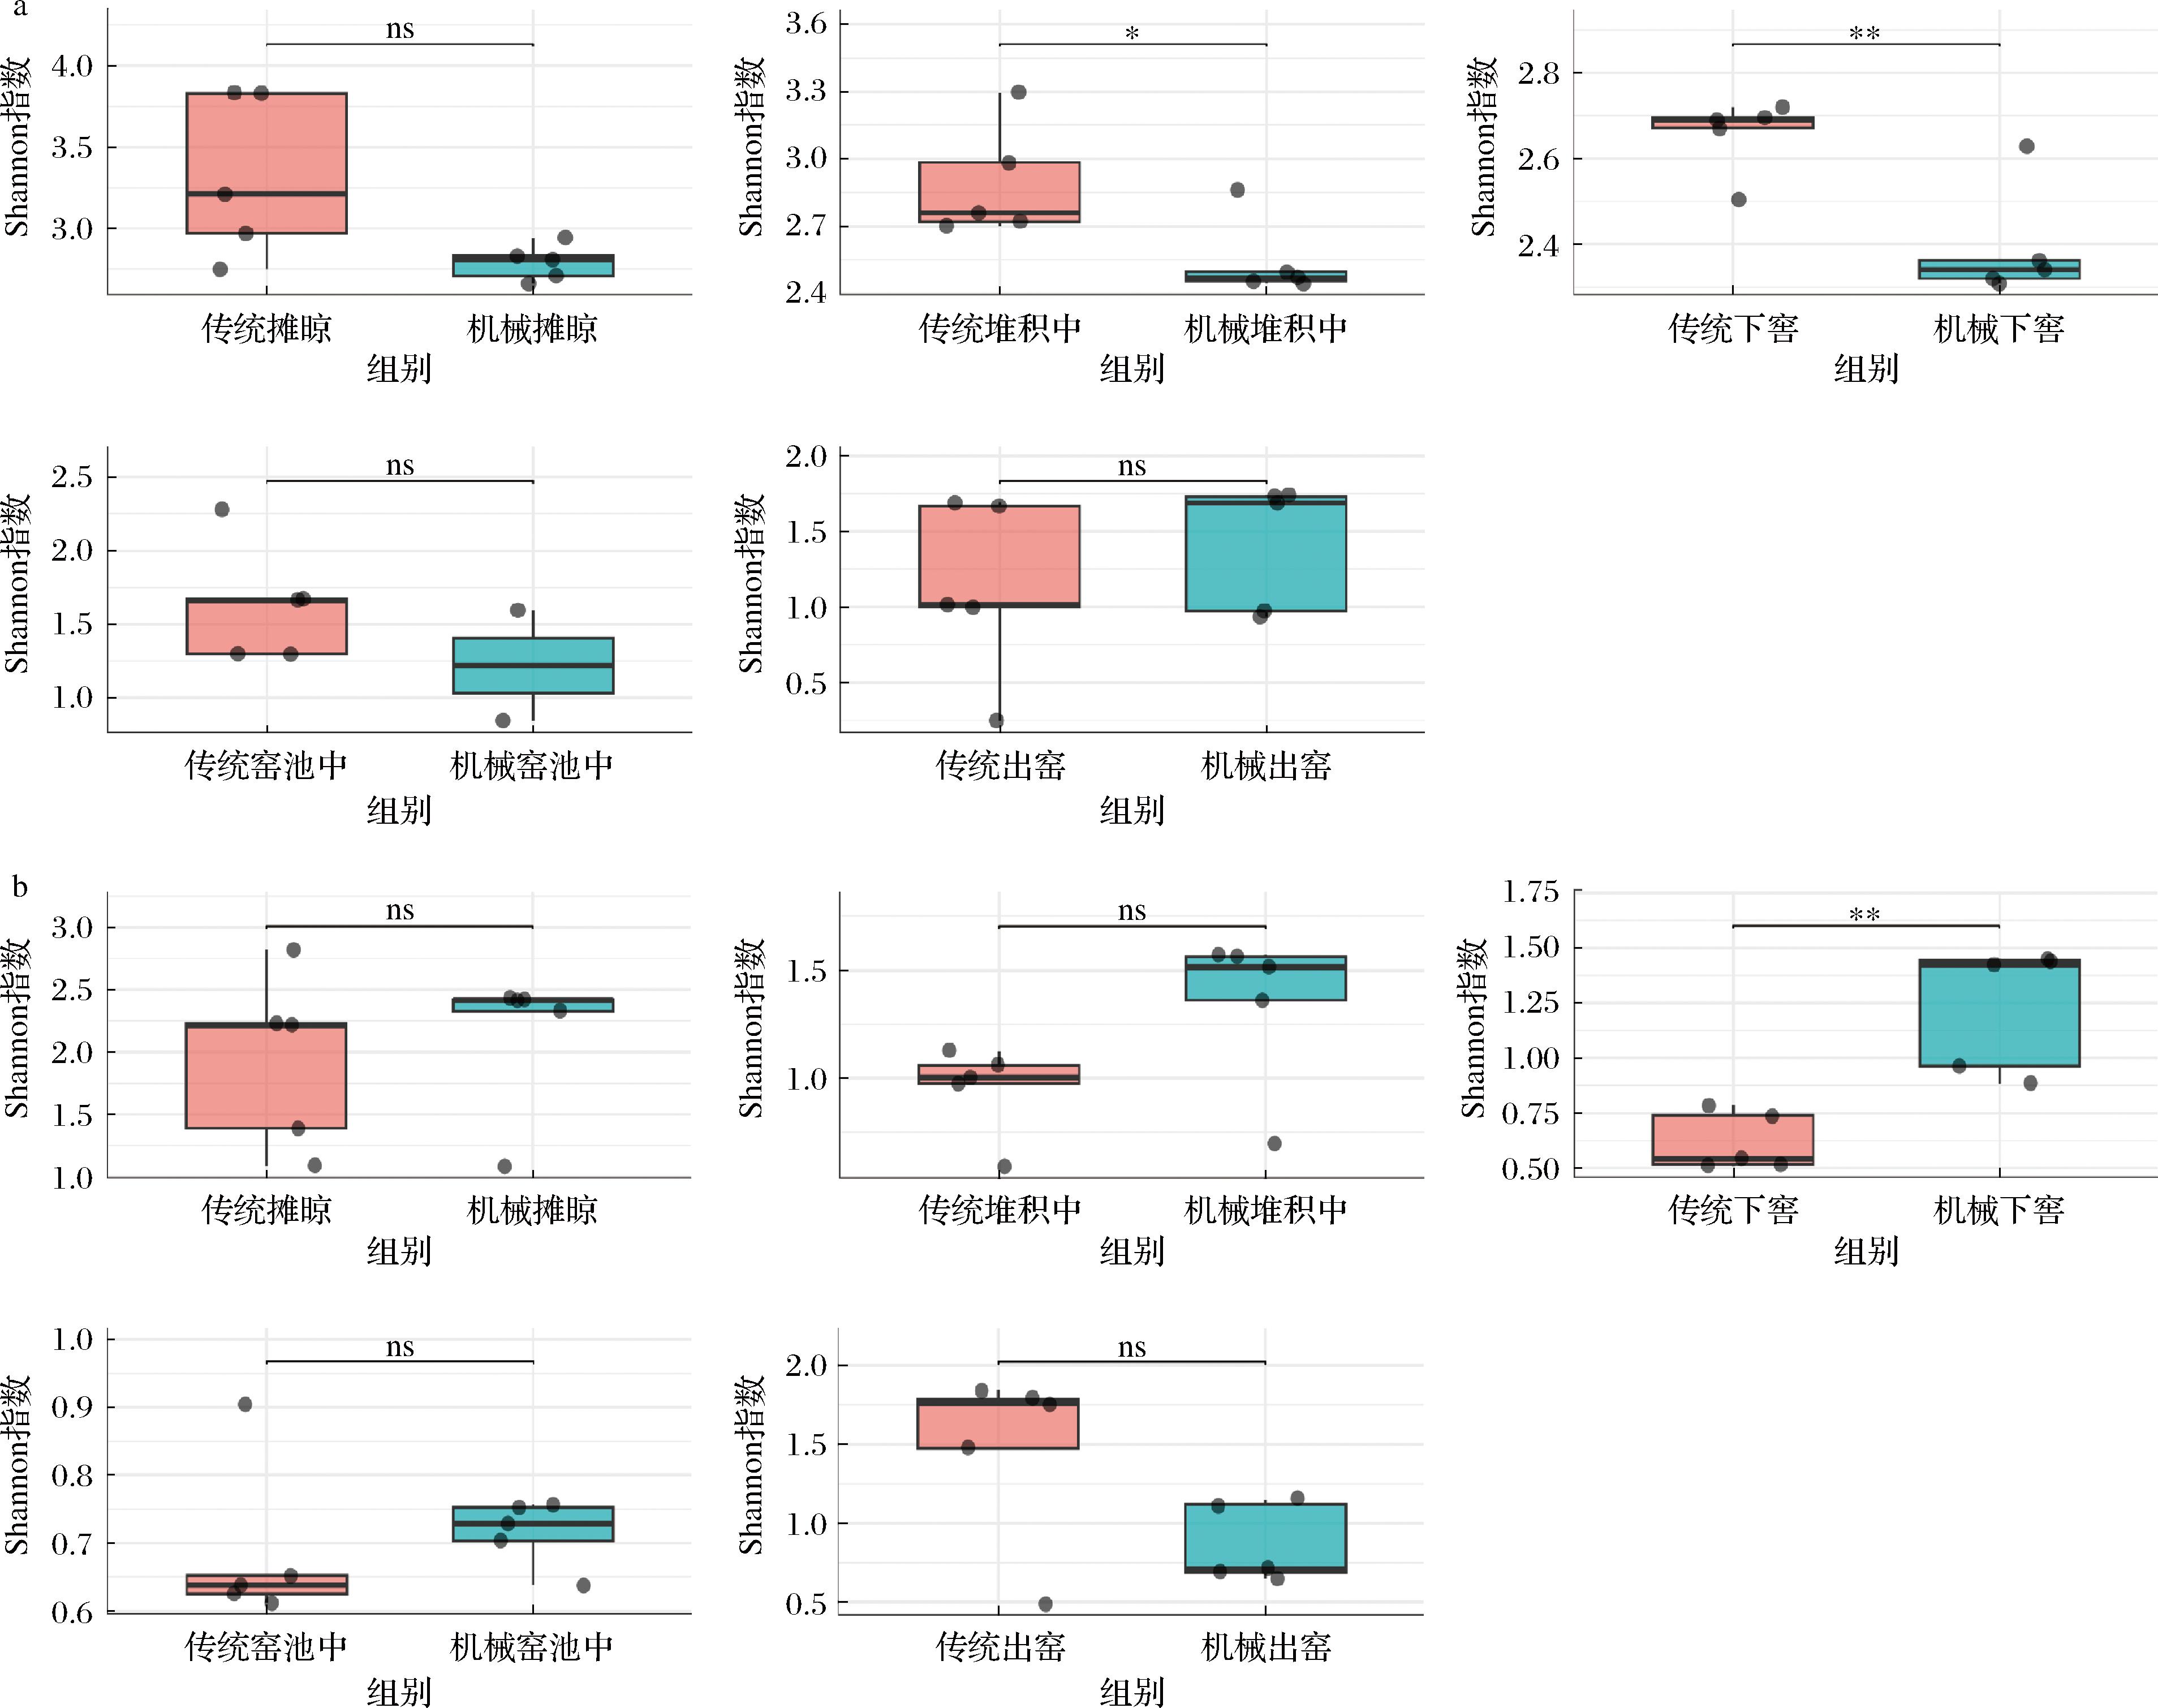
a-细菌Shannon多样性;b-真菌Shannon多样性
图3 机械与传统摊晾方法处理的糟醅在不同发酵阶段的细菌和真菌群落α多样性(Wilcoxon秩和检验)
Fig.3 Bacterial and fungal α-diversity (Shannon index) in Zaopei under mechanical and traditional airing methods across different phases (Wilcoxon rank-sum test)
注:*表示分组间P<0.05;**表示分组间P<0.01;ns表示分组间无显著差异。
试剂:CuSO4·5H2O、四水酒石酸钾钠、NaOH、亚甲蓝、酚酞(均为分析纯),国药集团化学试剂有限公司;配制用水为超纯水;样品基因组DNA提取采用E.Z.N.A.TM Mag-Bind Soil DNA Kit,美国Omega Bio-Tek公司;DNA精确定量采用QubitTM dsDNA HS Assay Kit,美国Thermo Fisher Scientific公司;PCR扩增产物切胶回收采用AxyPrep DNA Gel Extraction Kit,美国Axygen公司;文库片段分布及质控采用DNA 1000 Kit,美国Agilent Technologies公司。上述试剂盒所有操作步骤均按各厂家提供的产品说明书执行。
1.1.2 仪器与设备
FA2004B电子分析天平(万分之一),上海越平科学仪器有限公司;DHG-9030A电热恒温鼓风干燥箱,上海精宏实验设备有限公司;HWS-24数显恒温水浴锅,上海一恒科学仪器有限公司;PHSJ-3F台式pH计,上海雷磁仪器厂;Avanti JXN-30高速冷冻离心机,美国Beckman Coulter公司;Master S超纯水机,上海和泰仪器有限公司;QubitTM 3.0荧光计,美国Thermo Fisher Scientific公司;Veriti 96梯度PCR仪,美国Applied Biosystems公司;DYY-6C琼脂糖凝胶电泳仪,北京六一生物科技有限公司;GelDoc XR+凝胶成像系统,美国Bio-Rad公司;2100 Bioanalyzer生物片段分析仪,美国Agilent Technologies公司;Illumina MiSeq高通量测序平台,美国Illumina公司。
基因组DNA提取和Illumina MiSeq测序由生工生物科技(上海)有限公司完成。
1.2 实验方法
1.2.1 发酵理化参数测定
所有样品的含水率均采用重量法测定,在105 ℃下干燥至恒重。酸度、还原糖含量和淀粉含量根据《白酒生产技术全书》中记录的方法测定[15]。
1.2.2 GC-MS分析条件
1.2.2.1 GC条件
DB-5MS石英毛细管柱(30 m×0.25 mm×0.25 μm);进样口温度230 ℃;程序升温,35 ℃保持4 min,以5 ℃/min升至55 ℃,保持2 min,再以8 ℃/min升至120 ℃,再以10 ℃/min升至230 ℃,保持4 min。载气为He,流速1 mL/min,压力47.7 kPa。分流比为5∶1,溶剂延迟3 min。
1.2.2.2 MS条件
离子化方式:EI;电子能量70 eV;离子源温度230 ℃;色谱-质谱接口温度220 ℃;采集模式:全扫描;四级杆温度150 ℃;质量扫描范围40~450 m/z;扫描速率100 spectra/s。
1.2.3 香气成分的定性分析
由GC-MS分析所得的质谱图经计算机自带的NIST 08谱库检索,并结合保留指数进行定性。保留指数(retention index,RI)的测定方法为将正构烷烃标品按1.2.2节条件分析记录各正烷烃的保留时间,按照线性升温公式RI=100n+100(tx-tn)/(tn+1-tn)计算各组分RI值,其中tx、tn和tn+1分别为被分析组分、碳原子数处于n和n+1的正构烷烃(tn<tx<tn+1)流出峰的保留时间(min)。
1.2.4 糟醅微生物群扩增子测序
1.2.4.1 DNA提取
糟醅样品(50 g/份)在-20 ℃的无菌50 mL离心管中贮存,然后送到生工生物科技(上海)有限公司,进行基因组DNA提取。通过QubitTM dsDNA HS Assay Kit对DNA进行准确定量。
1.2.4.2 PCR扩增
分别使用正向(5′-CCTACGGGBGGCWGCAG-3′、5′-GCATCGATGAAGAACGCAGC-3′)、反向(5′-GACTACHVGGGTATCTAATCCCC-3′、5′-TCCTCCGCTTGA-TATGC-3′)引物在预设的PCR系统下扩增rRNA基因的细菌V3~V4区和真菌内部转录间隔区(internal transcribed spacer,ITS)。
1.2.4.3 扩增产物纯化与定量
使用10 g/L琼脂糖凝胶电泳分离目标条带,并用胶回收试剂盒切胶回收500~750 bp的片段。之后,将纯化后的产物再次通过Qubit和qPCR进行精确定量。
1.2.4.4 文库质检与MiSeq平台测序
将各样本按等物质的量混合形成最终文库。使用Agilent 2100 Bioanalyzer对文库进行质控,确认片段大小分布无异常且DNA片段无杂质污染。最后,在Illumina MiSeq平台上进行双末端测序(PE300)。
1.3 数据处理
1.3.1 扩增子数据处理
使用QIIME2软件对测序数据进行清洗和注释,获得最终的扩增子序列变体(amplicon sequence variants,ASVs) 特征注释表和系统发生关系。最后,以样本中数据量最少的ASVs为标准进行均一化处理,后续的分析都是基于均一化处理后的数据。本研究报告的原始序列数据已存储在国家基因组数据中心(中国科学院北京基因组研究所,GSA:CRA033316)的基因组序列档案(Genomics, Proteomics &Bioinformatics 2025)中并公开,可通过https://ngdc.cncb.ac.cn/gsa访问。
1.3.2 数据处理与可视化分析
使用R(4.2.3)中的vegan包计算造沙轮次机械和传统摊晾方式下发酵不同阶段糟醅微生物的α、β多样性和门水平上微生物的相对丰度。采用linkET和dplyr包进行Mantel test检验分析了20个微生物菌属与糟醅理化指标的相关性。使用R(4.2.3)中的vegan等包分别计算各组的加权后ASV数目、门与属水平上的相对丰度、在各分类阶元下线性判别式分析(linear discriminant analysis,LDA)>2的分组、各分组的Shannon指数、Bray-Curtis和各分组内样品经过Z-score均一化处理后的ASVs表达量。然后使用ggplot2绘制Shannon指数箱线图、Bray-Curtis主坐标分析(principal co-ordinates analysis,PCoA)、LefSe柱状图和LefSe进化树分支图。利用R(4.2.3)中的bootnet包对微生物与基酒风味物质参数间做关联性分析,将得出的edge和node数据使用qgraph绘制network图。最后,使用ggplot2包对上述处理后的数据进行可视化。
2 结果与分析
2.1 门水平微生物丰度差异分析
从摊晾后各时期门水平上优势微生物的数量变化可以发现,使用机械摊晾的优势微生物数量和变化趋势与传统摊晾方式基本一致,随着发酵过程的进行,芽孢杆菌门(Bacillota)数量逐渐增多,假单胞菌门(Pseudomonadota)和放线菌门(Actinomycetota)等其他菌门数量逐渐减少;真菌中则是子囊菌门(Ascomycota)随发酵进行逐渐增多,其他菌门数量逐渐减少(图1)。而在真菌和细菌相对丰度排名前5的微生物菌属中机械和传统摊晾糟醅在发酵各阶段细菌的结构都非常相似,呈现随发酵时间延长一种未分类的乳酸杆菌属(unclassified_Lactobacillaceae)逐渐增加,其他菌属(others)逐渐减少的趋势;真菌上则略有差异,尽管机械和传统摊晾糟醅在发酵各阶段中的真菌均由毕赤酵母属(Pichia)主导,但传统摊晾糟醅在摊晾和下窖阶段的相对丰度略高于机械摊晾糟醅(图2)。
2.2 α多样性分析
通过对比造沙轮次传统人工摊晾和机械摊晾及不同阶段糟醅微生物的物种Shannon指数多样性可以发现,在细菌的Shannon指数上机械摊晾糟醅的微生物Shannon多样性普遍低于传统摊晾糟醅,其中机械摊晾拌曲的糟醅在堆积发酵中期(P=0.037)、完堆下窖时(P=0.005)的微生物群落Shannon指数显著低于传统人工摊晾糟醅。而糟醅中真菌群落的Shannon指数则恰好相反,呈现机械摊晾糟醅普遍高于传统人工摊晾糟醅的态势,其中,机械摊晾糟醅在传统下窖(P=0.008)时的Shannon指数显著高于传统人工摊晾(图3)。
2.3 β多样性分析
从微生物群落结构多样性(β多样性)的角度来看,机械和传统摊晾的糟醅主要是在堆积中期(P=0.044)和下窖时期(P=0.006)存在显著差异。此外,从PCoA轴的微生物分布来看,机械和传统摊晾的糟醅也存在差异,机械摊晾的糟醅微生物结构在PCoA2轴上较为集中,而传统摊晾的糟醅则在PCoA1轴上较为集中,这表明不同摊晾方式使糟醅微生物群落结构出现了差异,整体呈现摊晾和堆积发酵时期差异显著,而经过窖池发酵后这种差异减小(图4)。
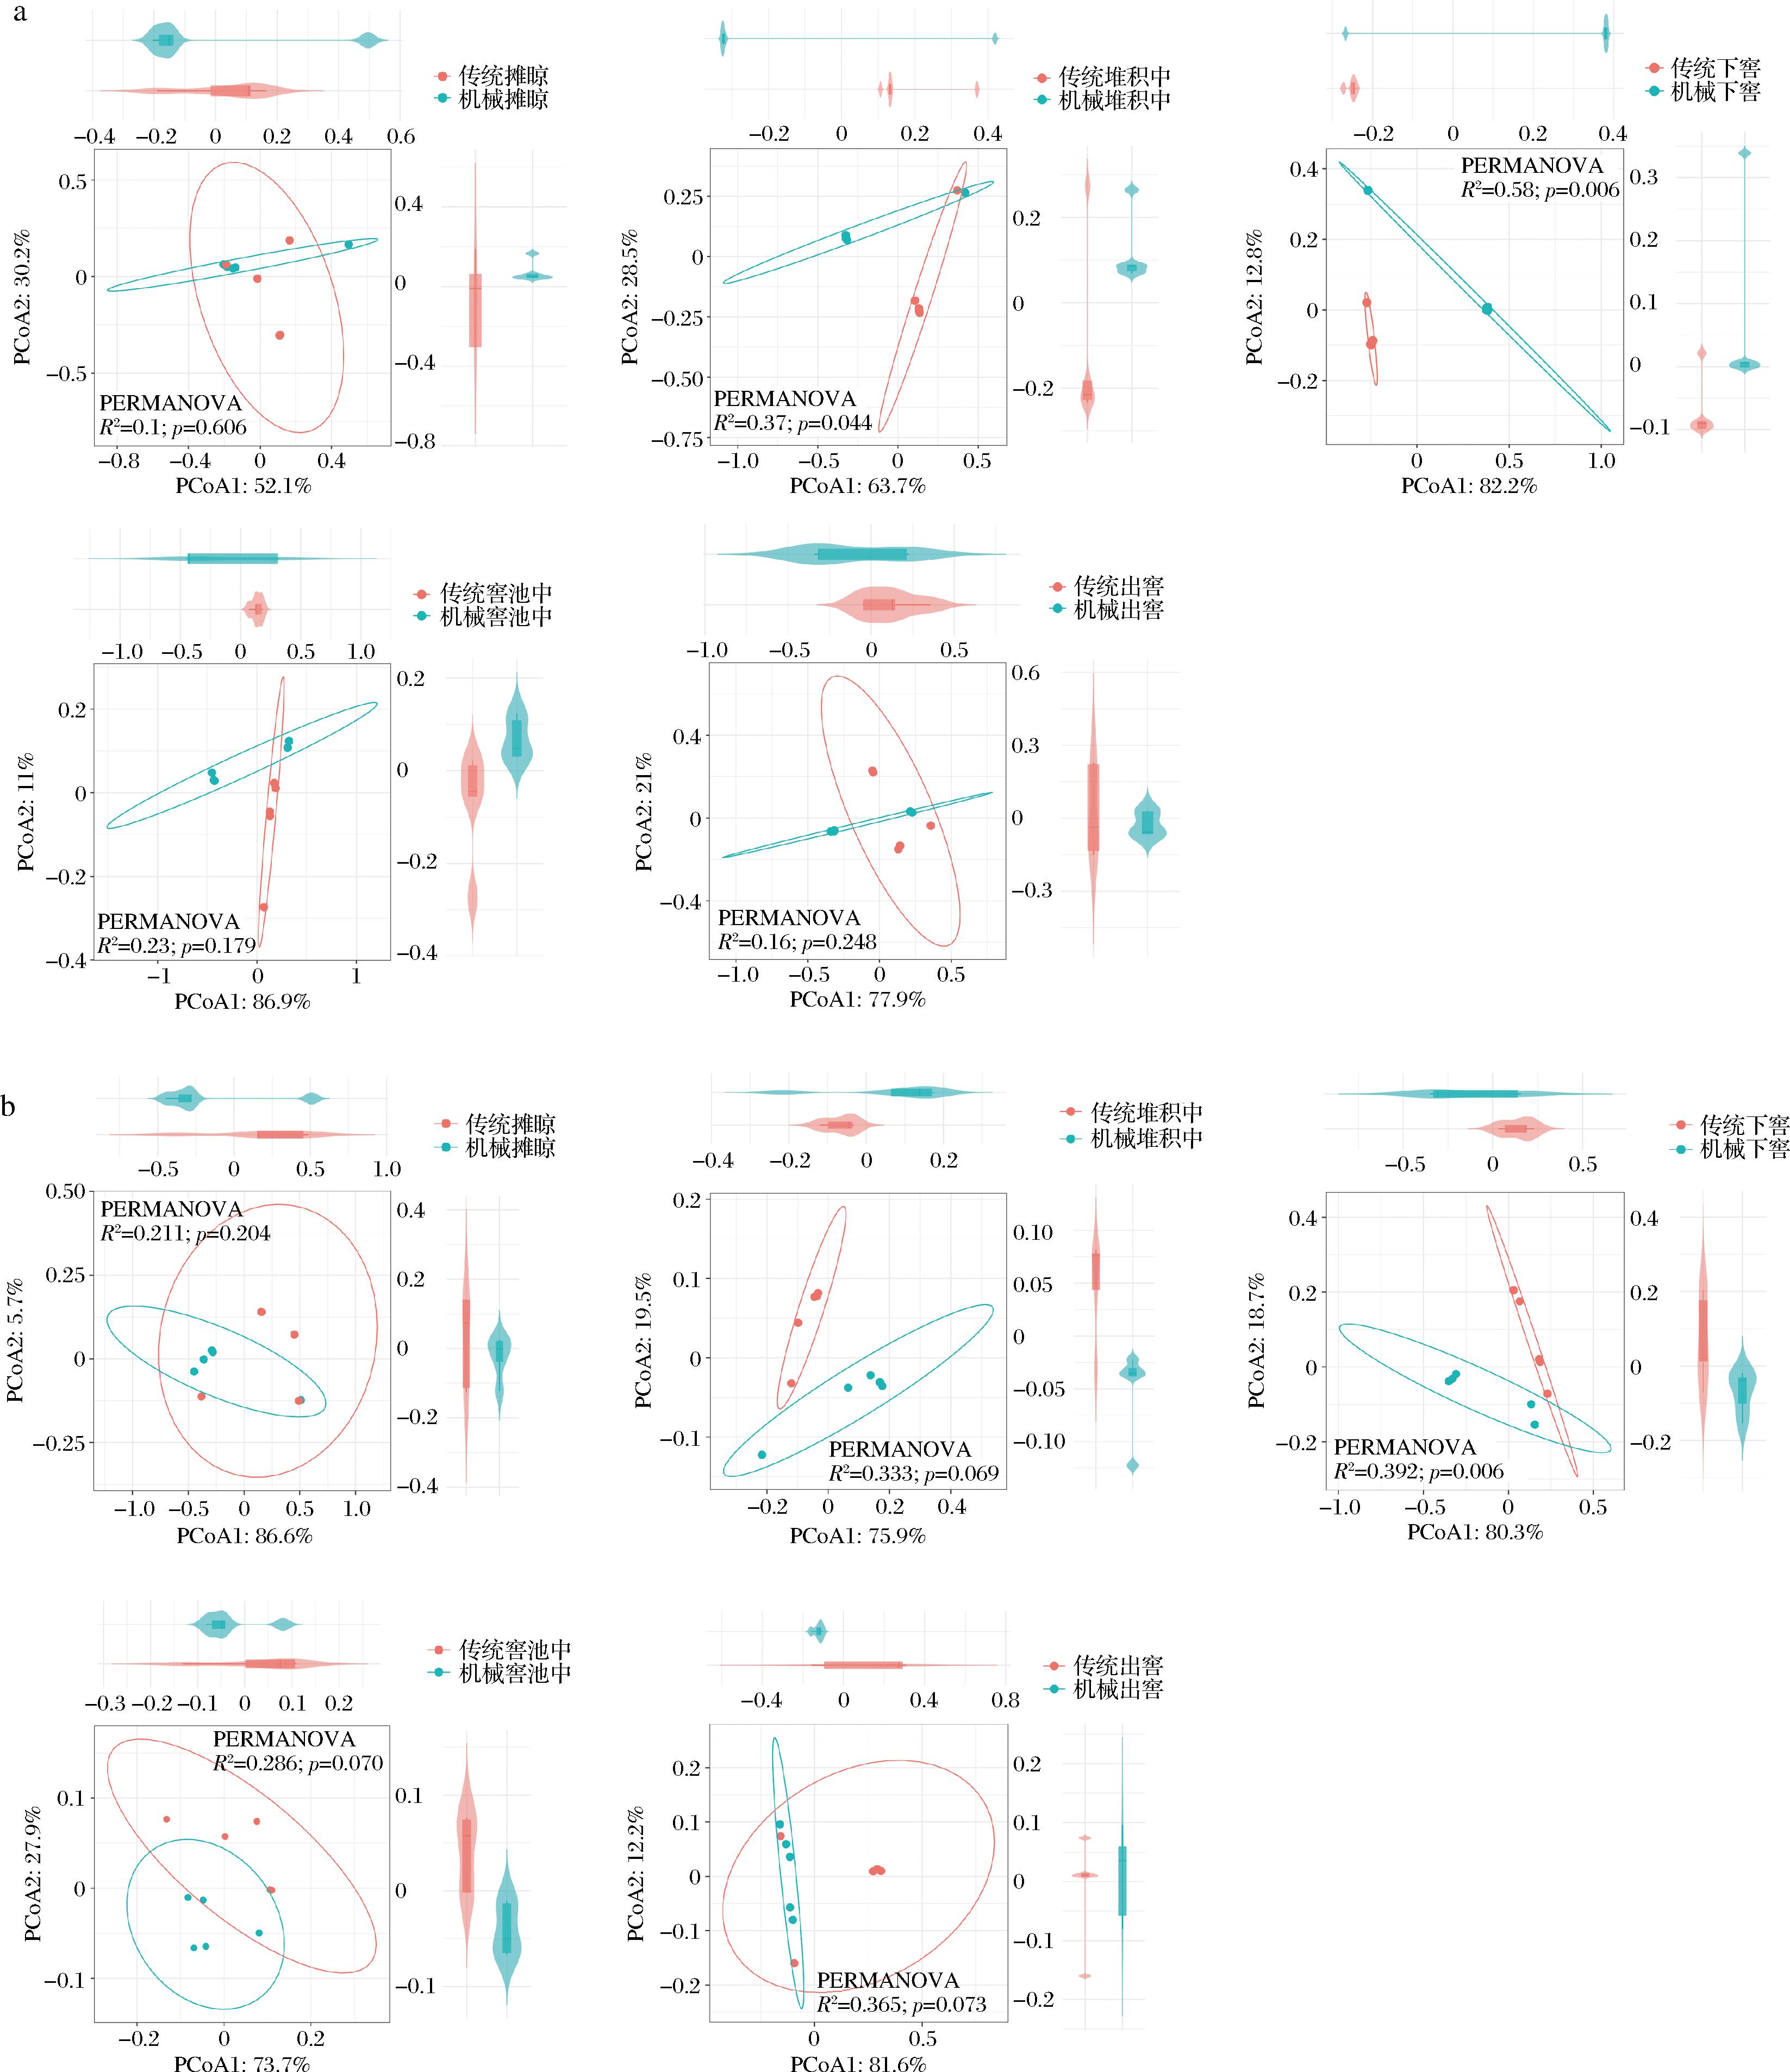
a-细菌β多样性;b-真菌β多样性
图4 机械和传统摊晾方法的糟醅在不同时期细菌微生物群落β多样性(Bray-Curtis)
Fig.4 β diversity (Bray-Curtis) of microbial communities in Zaopei using mechanical and traditional airing methods at different period
2.4 物种差异分析
上述分析表明,机械与传统摊晾方式下的微生物群落整体差异不大,只在某些发酵阶段存在显著差异。为此,对2种摊晾方式在属水平上的微生物群落组成进行了比较,并分析了2种摊晾方式的糟醅在发酵不同阶段系统发育树中的主要差异微生物。
结果表明,在整个糖化堆发酵过程中,传统摊晾方式下的细菌属总数高于机械摊晾方式,差异主要体现在短乳杆菌属(Levilactobacillus,LDA=4.2)、伴生乳杆菌属(Companilactobacillus,LDA=2.5)和寡碳乳杆菌属(Paucilactobacillus,LDA=2.3)等类群。而在机械摊晾组中,未发现任何细菌属的微生物数量显著高于传统摊晾组(所有细菌LDA<2.0;图5-a)。

a-细菌群落;b-真菌群落
图5 机械和传统摊晾方法的糟醅在发酵全阶段的微生物群落LefSe分析
Fig.5 LefSe analysis of the microbial community in Zaopei throughout the entire fermentation process using mechanical and traditional airing methods
值得注意的是,真菌群落的富集趋势与细菌相反:机械摊晾糟醅中真菌的相对丰度普遍高于传统摊晾糟醅。具体而言,拟青霉属(Paecilomyces,LDA=4.4)、复膜孢酵母属(Saccharomycopsis,LDA=3.4)、柯达酵母属(Kodamaea,LDA=3.3)和斯塔莫酵母属(Starmerella,LDA=3.2)等在机械组中显著富集;而传统摊晾组仅在假丝酵母属(Candida,LDA=3.3)和赛博林德拉属(Cyberlindnera,LDA=3.1)上表达较高(图5-b)。
通过LEfSe进化树分析进一步发现,在具有显著差异(P ≤ 0.05)的微生物类群中,采用地面机械摊晾的糟醅在摊晾阶段与传统摊晾阶段糟醅微生物群落差异较大,在下窖后糟醅微生物群落差异得到减少(附图2)。
2.5 糟醅微生物与理化指标关联性分析
对当轮次糟醅理化指标进行显著性检验,结果表明,在水分控制方面:机械摊晾在多数阶段水分低于传统摊晾,尤其在出窖阶段(上、中、下层)差异显著。说明机械摊晾可能更利于糟醅的水分控制。在酸度变化方面:传统摊晾在出窖中层酸度显著低于机械摊晾(P≤0.05)。机械摊晾在出窖下层酸度略高,但未达显著水平。这反映出机械摊晾可能提高了糟醅中产酸细菌在窖池内的生存能力。在淀粉和还原糖消耗方面:传统摊晾的出窖上层淀粉含量显著高于机械摊晾(P≤0.05),同时传统摊晾糟醅还原糖含量在窖池中期和出窖下层也显著高于机械摊晾(P≤0.05),表明机械摊晾的微生物群落在对糖类物质的消耗效率上略高于传统摊晾(表1)。
表1 机械和传统摊晾下不同发酵阶段糟醅理化指标
Table 1 Physicochemical indices of Zaopei under mechanical and traditional spreading-cooling on different fermentation stages
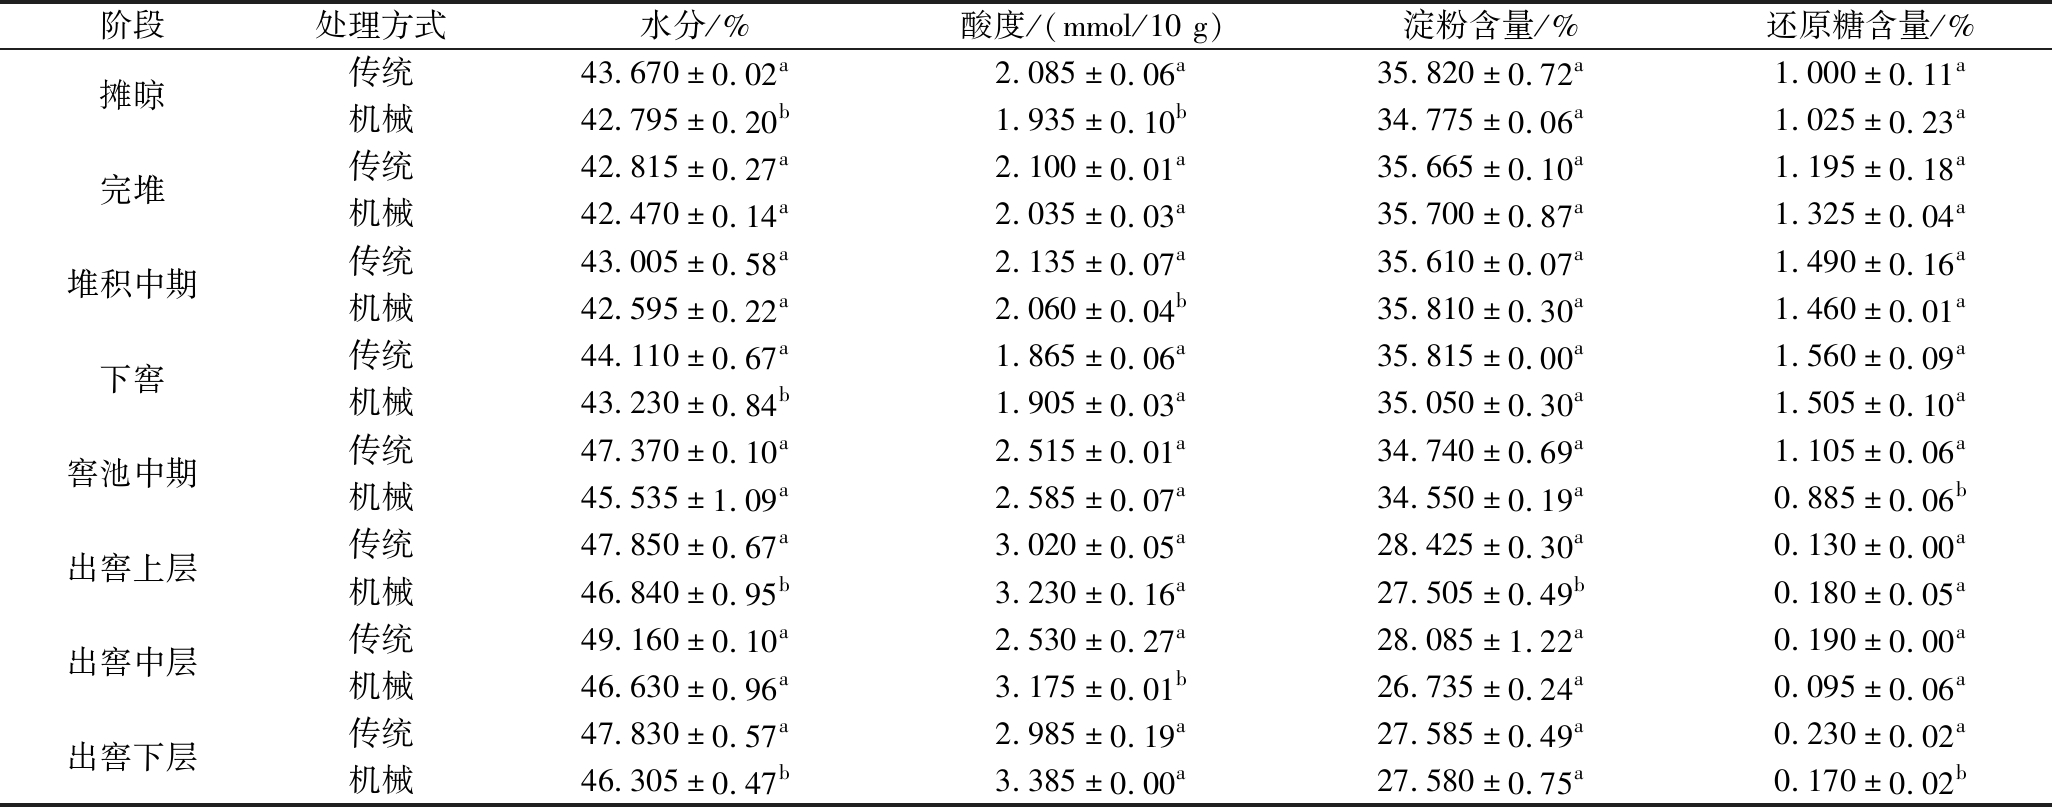
注:不同上标字母表示分组存在显著差异。
阶段处理方式水分/%酸度/(mmol/10 g)淀粉含量/%还原糖含量/%摊晾传统43.670±0.02a2.085±0.06a35.820±0.72a1.000±0.11a机械42.795±0.20b1.935±0.10b34.775±0.06a1.025±0.23a完堆传统42.815±0.27a2.100±0.01a35.665±0.10a1.195±0.18a机械42.470±0.14a2.035±0.03a35.700±0.87a1.325±0.04a堆积中期传统43.005±0.58a2.135±0.07a35.610±0.07a1.490±0.16a机械42.595±0.22a2.060±0.04b35.810±0.30a1.460±0.01a下窖传统44.110±0.67a1.865±0.06a35.815±0.00a1.560±0.09a机械43.230±0.84b1.905±0.03a35.050±0.30a1.505±0.10a窖池中期传统47.370±0.10a2.515±0.01a34.740±0.69a1.105±0.06a机械45.535±1.09a2.585±0.07a34.550±0.19a0.885±0.06b出窖上层传统47.850±0.67a3.020±0.05a28.425±0.30a0.130±0.00a机械46.840±0.95b3.230±0.16a27.505±0.49b0.180±0.05a出窖中层传统49.160±0.10a2.530±0.27a28.085±1.22a0.190±0.00a机械46.630±0.96a3.175±0.01b26.735±0.24a0.095±0.06a出窖下层传统47.830±0.57a2.985±0.19a27.585±0.49a0.230±0.02a机械46.305±0.47b3.385±0.00a27.580±0.75a0.170±0.02b
对糟醅微生物群落和理化指标进行相关性分析,结果表明,未分类的乳酸杆菌属(unclassified_Lactobacillaceae)数量受糟醅理化指标的影响较大(P<0.01, r>0.4),此外,枝芽胞杆菌属(Virgibacillus)、芽孢杆菌属(Bacillus)、片球菌属(Pediococcus)等多种细菌微生物属也易受糟醅理化指标变化的影响。而与糟醅理化指标相关的真菌仅有孢圆酵母属(Torulaspora)和曲霉属(Aspergillus)(P<0.05, r<0.2)(附图3)。
2.6 基酒风味物质差异分析
对机械摊晾和传统摊晾下轮次基酒中的风味物质含量进行显著性检验,有14种风味物质存在显著差异,对存在显著差异的14种风味物质和微生物丰度数据进行相关性分析,结果表明,在细菌中,多种未分类的乳酸杆菌属(unclassified_Lactobacillaceae)的差异是造成机械和传统摊晾组风味物质数量存在差异的主要原因;而在真菌中则是多种假丝酵母菌属(Candida)、毕赤酵母属(Pichiaceae_Pichia)等微生物的差异造成了这14种风味物质在机械摊晾的基酒中显著低于传统摊晾(附表1、图6)。
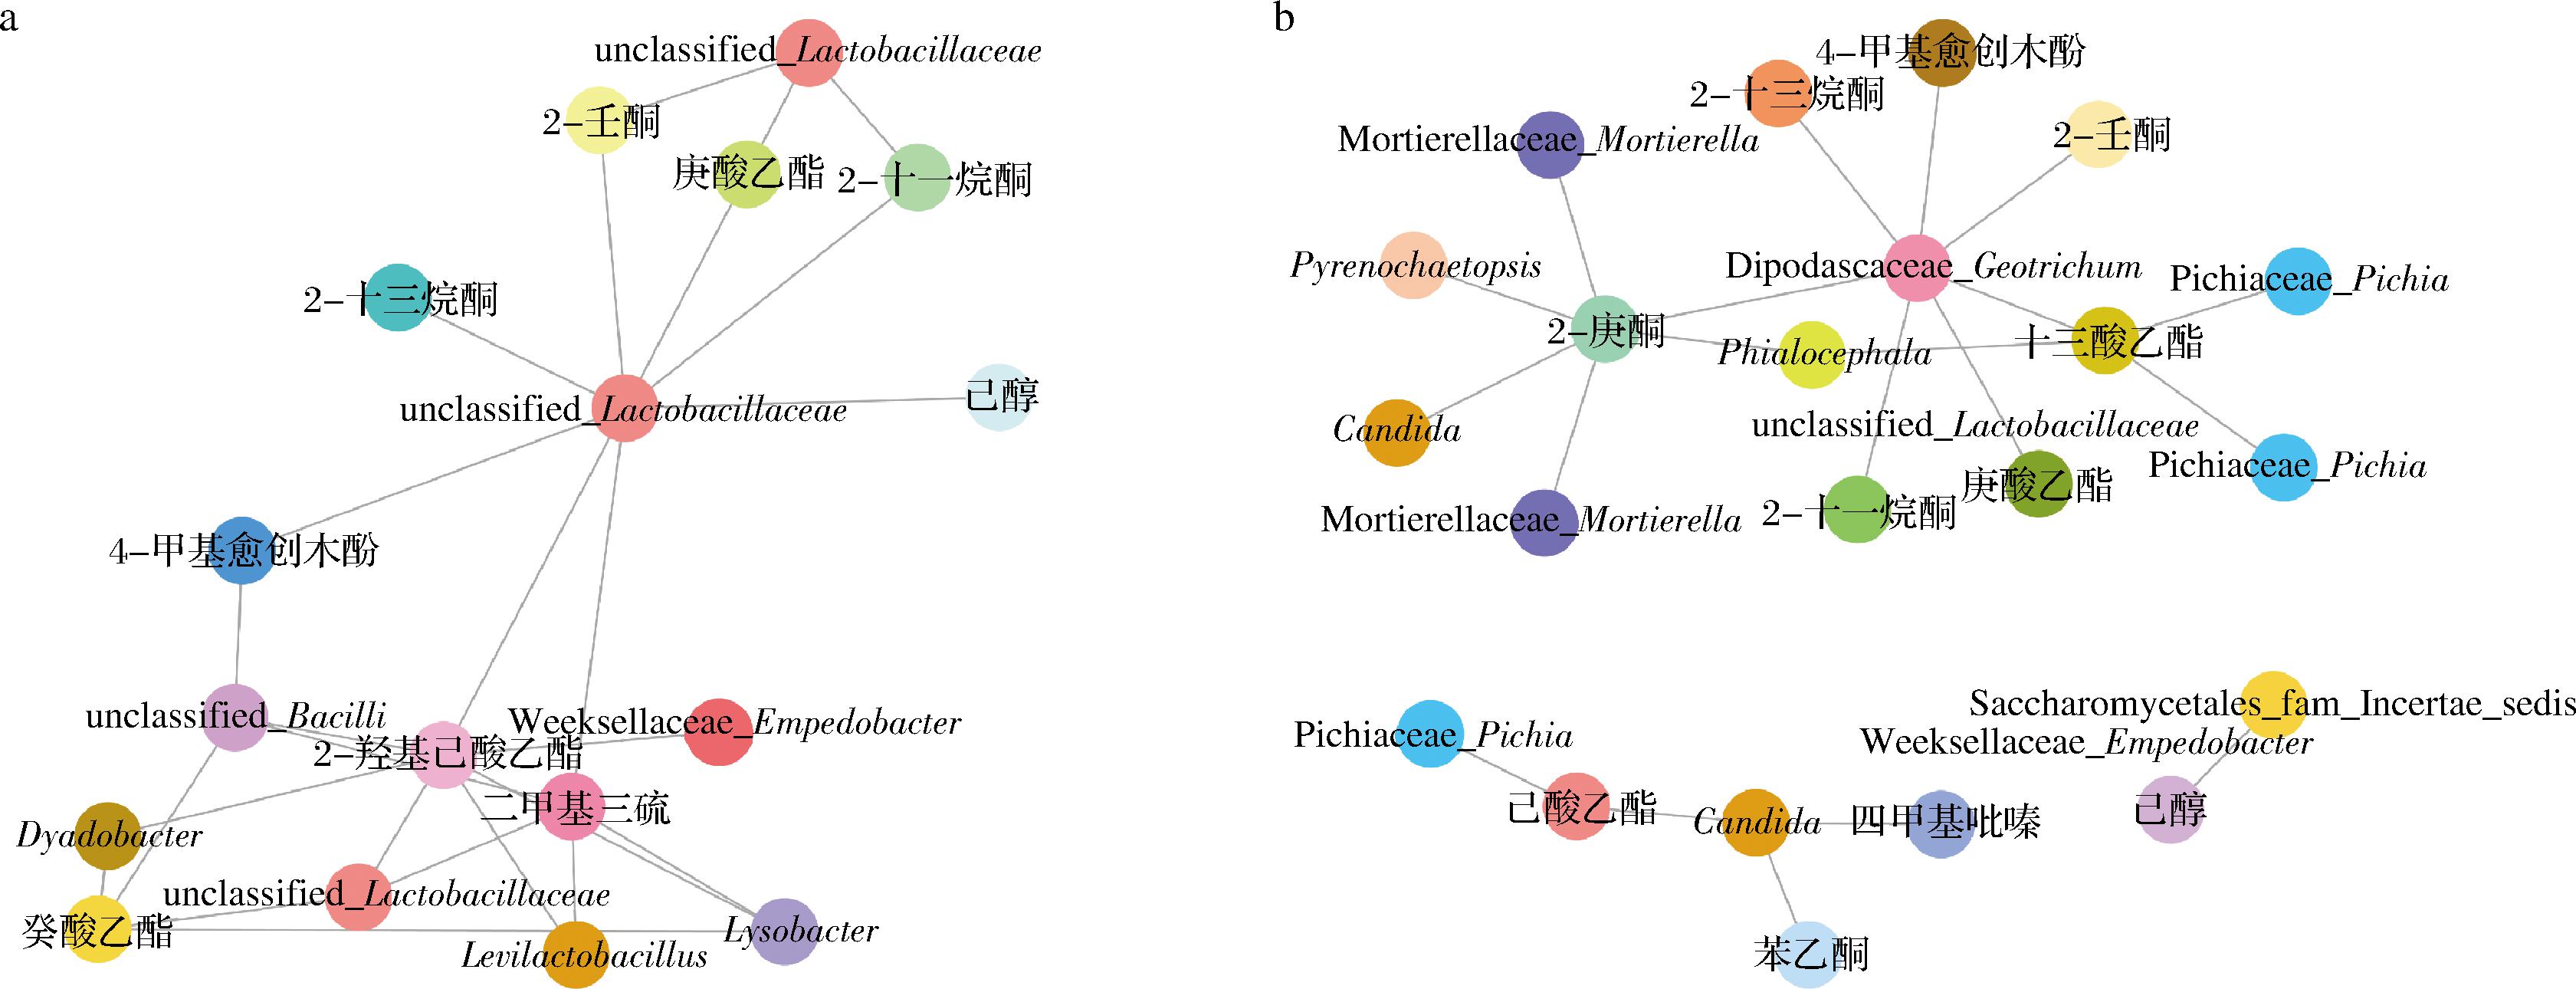
a-细菌;b-真菌
图6 基酒风味物质和糟醅微生物群落网络关系图
Fig.6 Co-occurrence network between flavor compounds in base liquor and the microbial community in fermented grains
3 结论与讨论
本研究系统比较了往复式地面机械摊晾与传统摊晾方式在不同造沙轮次摊晾阶段对糟醅理化指标及微生物群落结构的影响。结果表明,在摊晾前期,机械摊晾与传统摊晾的微生物组成存在一定差异;随着堆积发酵的进行,该差异逐渐减小,至出窖阶段微生物群落结构已无显著区别。分析认为,造成这一变化的原因可能在于前期糟醅微生物主要来源于摊晾器具,而后期则受地面及窖池环境微生物的影响较大。目前主流的板链式机械摊晾(以下简称板链摊晾)相比传统的人工摊晾在摊晾方法和操作流程上存在较大差异,这也造成了使用板链摊晾的糟醅在发酵后期微生物群与传统摊晾存在差异,推断可能是板链摊晾使糟醅未能与地面微生物充分接触[16]导致。目前来看,尽管机械摊晾在糟醅微生物群落结构上存在差异,但表现到具体的微生物属上则呈现出互有优劣的态势,具体表现为:传统摊晾方式更有利于毕赤酵母(Pichia)等具有产香相关功能微生物的富集[17],而机械摊晾则倾向于促进淀粉糖化、水解等相关功能微生物的增殖,二者在微生物功能构成上表现出互补特征。
一项研究证实短乳杆菌属(Levilactobacillus)在产生乳酸、调节发酵食品风味方面具有重要意义,这或会对机械摊晾糟醅在后续发酵阶段中乳酸等风味物质的产生有潜在影响[18]。而传统摊晾糟醅在下窖阶段毕赤酵母属(Pichia)相对丰度显著高于机械摊晾糟醅,这也进一步表明传统摊晾糟醅比机械摊晾糟醅有更大的产香潜力[17]。相对传统摊晾方式,机械摊晾糟醅微生物倾向于在曲霉属(Aspergillus)、根霉属(Rhizopus)等水解大分子糖类(如淀粉)的真菌中高表达[19-20]。在一项对于不同分离源乳酸乳球菌(Lactococcus lactis)代谢产物的研究当中验证了其在代谢中会生成2,3-丁二酮、乙偶英、2-十一酮、庚醛、己醛、壬醛、2-壬酮和乙酸等化合物[21],同时另一项研究表明,2-壬酮在白酒中可能会提供油脂的香气[22]。本研究中传统摊晾糟醅的短乳杆菌属(Levilactobacillus)、伴生乳杆菌属(Companilactobacillus)和寡碳乳杆菌属(Paucilactobacillus)高于机械摊晾糟醅,这可能会使传统摊晾基酒风味物质相比机械摊晾更加丰富。同时,研究发现对白酒呈现出花果香气可能有重要贡献的2-庚酮主要受假丝酵母菌属(Candida)、被孢霉属(Mortierellaceae_Mortierella)、地霉属(Dipodascaceae_Geotrichum)等多种真菌的影响,而LefSe分析也证实在传统摊晾糟醅中假丝酵母菌属(Candida)的数量要高于机械摊晾,这表明传统摊晾糟醅基酒风味可能相比机械摊晾更加丰富[23]。
此外,糟醅理化指标和基酒香味物质骨架成分也证实了上述微生物群落差异造成的影响,机械摊晾糟醅中的淀粉和糖原消耗更快,可能对下轮次产酒量的提高有潜在影响,而传统摊晾糟醅基酒中香味物质含量更丰富,可能会增加基酒风味丰富度。尽管有研究者[24]利用Fluent软件仿真运算模拟传统人工摊晾的过程,提高了板链摊晾的摊晾效果。但板链摊晾仍然存在微生物群落和人工摊晾差异大、糟醅精细度差等问题。相比板链摊晾,本研究采取的机械摊晾与传统摊晾的微生物群落差异更小,且在糖化和淀粉水解方面的功能微生物培养上更具优势。酱香型白酒是在开放式环境中生产,有研究[25]表明,地面微生物的定植对糟醅微生物群落构建的贡献占50%以上。因此,在目前对白酒发酵功能微生物的研究尚不明确的情况下使用往复式地面机械摊晾设备能较好还原传统生产工艺的糟醅微生物群落特征。
本研究立足于现有板链式机械摊晾的不足,将行业普遍采用的板链摊晾方式革新为地面摊晾。该设计在实现机械化操作的同时,旨在更大程度地模拟传统人工摊晾的环境,从而有效保留其原有的微生物区系。尽管地面机械摊晾相比传统人工摊晾仍在毕赤酵母(Pichia)、假丝酵母(Candida)等少数微生物属种群丰富度上存在差异,但其糟醅理化指标及基酒风味物质含量均已趋近于传统人工摊晾水平。本研究可为白酒摊晾机械化的改进路径及功能微生物的定向筛选提供理论依据与数据支撑。
[1] 唐丽云, 朱孟江. 酱香型白酒生产工艺及关键工艺原理简述[J]. 中国食品工业, 2022(9): 101-104.Tang L Y, Zhu M J. Brief introduction of Jiangxiang Baijiu production technology and principles of key processes[J]. China Food Industry, 2022, (9): 101-104.
[2] 张健, 李波, 程平言, 等. 酱香型白酒制酒机械化生产试验的研究[J]. 中国酿造, 2018, 37(12):148-153.Zhang J, Li B, Cheng P Y, et al. Mechanized production test of Moutai-flavor Baijiu making[J]. China Brewing, 2018, 37(12):148-153.
[3] Hu Y L, Yang Q, Chen D, et al. Study on microbial communities and higher alcohol formations in the fermentation of Chinese Xiaoqu Baijiu produced by traditional and new mechanical technologies[J]. Food Research International, 2021, 140:109876.
[4] Wu C, Hu J F, Xie D, et al. Comparison of physicochemical parameters, microbial community composition and flavor substances during mechanical and traditional brewing process of Jiang-flavor Baijiu[J]. Food Science and Biotechnology, 2024, 33(8):1909-1919.
[5] 刘利萍, 杜亚珂, 吴成, 等. 酱香型白酒智能化酿造研究进展[J]. 中国酿造, 2025, 44(6):14-19.Liu L P, Du Y K, Wu C, et al. Research progress on the intelligent brewing of sauce-flavor Baijiu[J]. China Brewing, 2025, 44(6):14-19.
[6] Xie J, Hong J X, Zhang C S, et al. Machine learning-assisted identification of core flavor compounds and prediction of core microorganisms in fermentation grains and pit mud during the fermentation process of strong-flavor Baijiu[J]. Food Chemistry, 2025, 495:146426.
[7] Wu Q, Chen B, Xu Y. Regulating yeast flavor metabolism by controlling saccharification reaction rate in simultaneous saccharification and fermentation of Chinese Maotai-flavor liquor[J]. International Journal of Food Microbiology, 2015, 200:39-46.
[8] Wei J L, Du H, Xu Y. Revealing the key microorganisms producing higher alcohols and their assembly processes during Jiang-flavor Baijiu fermentation[J]. Food Bioscience, 2024, 61:104569.
[9] Yang L, Xian C, Li P, et al. The spatio-temporal diversity and succession of microbial community and its environment driving factors during stacking fermentation of Maotai-flavor Baijiu[J]. Food Research International, 2023, 169:112892.
[10] Yang L, Huang X D, Hu J F, et al. The spatiotemporal heterogeneity of microbial community assembly during pit fermentation of soy sauce flavor Baijiu[J]. Food Bioscience, 2024, 61:104438.
[11] 龙可, 敖宗华, 蔡小波, 等. 摊晾方式对泸型酒入窖糟醅的影响研究[J]. 酿酒科技, 2014(8):9-11;15.Long K, Ao Z H, Cai X B, et al. Study on the effects of different airing methods on pit-entry fermented grains of Luzhou-flavor Baijiu(liquor)[J]. Liquor-Making Science &Technology, 2014(8):9-11;15.
[12] 邓皖玉, 许永明, 程伟, 等. 摊晾面积对酱香型白酒窖池产出差异性的影响[J]. 酿酒科技, 2019(12):32-35.Deng W Y, Xu Y M, Cheng W, et al. Effects of cooling area on the discrepancy in the yield of Jiangxiang Baijiu[J]. Liquor-Making Science &Technology, 2019(12):32-35.
[13] 蒋红军. 酱香型白酒机械摊晾与传统摊晾场地微生物对比[J]. 酿酒科技, 2003(6):38-39.Jiang H J. Microorganism contrast between mechanical airing and traditional airing for Maotai-flavor liquor[J]. Liquor-making Science &Technology, 2003(6):38-39.
[14] Wang L Q, Tang P, Zhao Q, et al. Difference between traditional brewing technology and mechanized production technology of jiangxiangxing Baijiu: Micro ecology of Zaopei, physicochemical factors and volatile composition[J]. Food Research International, 2024, 192:114748.
[15] 沈怡方. 白酒生产技术全书[M]. 北京: 中国轻工业出版社, 1998. Shen Y F. Book of Baijiu Production Technology[M]. Beijing: China Light Industry Press, 1998.
[16] 张陆媛, 陈业楠, 朱文优, 等. 浓香型白酒机械化与传统酿造车间摊晾环境微生物特征分析[J]. 中国食品工业, 2025(4):109-111.Zhang L Y, Chen Y N, Zhu W Y, et al. Analysis on microbial characteristics of Luzhou-flavor liquor mechanization and traditional brewing workshop spreading and drying environment[J]. China Food Industry, 2025(4):109-111.
[17] 倪冰倩, 夏韩硕, 闵伟红, 等. Pichia kudriavzevii生物强化对酱香型白酒酒醅微生物群落结构及挥发性风味组分的影响[J]. 食品科学技术学报, 2024, 42(2):93-108; 130.Ni B Q, Xia H S, Min W H, et al. Effect of biofortification with Pichia kudriavzevii on community structure and volatile flavour fractions of fermented grains of sauce-aroma Baijiu[J]. Journal of Food Science and Technology, 2024, 42(2):93-108; 130.
[18] Zhang X R, Li Y X, Zhao Y R, et al. Effect of Levilactobacillus brevis as a starter on the flavor quality of radish Paocai[J]. Food Research International, 2023, 168:112780.
[19] 黄永光. 酱香型白酒酿造中Aspergillus hennebergii及其分泌酸性蛋白酶的研究[D]. 无锡: 江南大学, 2014. Huang Y G. Study on secretome and acid protease of Aspergillus hennebergii from the brewing process of Moutai-liquor[D]. Wuxi: Jiangnan University, 2014.
[20] 陈镇, 樊悦, 罗惠波, 等. 戴尔根霉固态发酵特性及影响因素研究[J]. 中国酿造, 2025, 44(5):60-65.Chen Z, Fan Y, Luo H B, et al. Characteristics and influencing factors of solid-state fermentation of Rhizopus delemar[J]. China Brewing, 2025, 44(5):60-65.
[21] Yu X, Sun Y R, Shen X, et al. Effect of different isolation sources of Lactococcus lactis subsp. lactis on volatile metabolites in fermented milk[J]. Food Chemistry, 2024, 21:101224.
[22] 何艳艳, 刘俊男, 李瑞杰, 等. 酱香型白酒风味及其关键物质分析技术研究进展[J]. 中国酿造, 2024, 43(11):1-7.He Y Y, Liu J N, Li R J, et al. Research progress on the flavor and key substance analysis techniques of sauce-flavor Baijiu[J]. China Brewing, 2024, 43(11):1-7.
[23] 陈臣, 田同辉, 刘政, 等. 基于感官评价、GC-IMS和GC-MS的中式酸凝奶酪挥发性风味比较[J]. 食品科学, 2023, 44(16):228-236.Chen C, Tian T H, Liu Z, et al. Comparative study on volatile flavor of Chinese acid-curd cheese using sensory evaluation, gas chromatography-ion mobility spectrometry and gas chromatography-mass spectrometry[J]. Food Science, 2023, 44(16):228-236.
[24] 张超, 陈涛, 周中林, 等. 基于非平衡热模拟的粮糟摊晾工艺优化[J]. 食品与机械, 2024, 40(10):101-107.Zhang C, Chen T, Zhou Z L, et al. Study of grain spreading and cooling process based on non equilibrium thermal simulation[J]. Food and Machinery, 2024, 40(10):101-107.
[25] 朱安然, 汪地强, 胡建锋, 等. 酱香型白酒一轮次糟醅微生物群落结构及溯源分析[J]. 食品科学, 2025, 46(4):117-125.Zhu A R, Wang D Q, Hu J F, et al. Microbial community structure and traceability in fermented grains for Jiang-flavor Baijiu during the first round of fermentation[J]. Food Science, 2025, 46(4):117-125.