青钱柳(Cyclocarya paliurus)系胡桃科青钱柳属的落叶乔木植物,为我国特有的珍稀药用植物资源,主要分布于长江流域以南的山区,因其果实形如钱币,故又称之为摇钱树。现代药理学研究表明,青钱柳叶富含多糖、黄酮、三萜等多种生物活性成分,具有显著的降血糖、抗氧化及增强免疫力等功效[1-2]。然而,青钱柳叶固有的味辛、微苦和青草味严重影响了其直接食用或简单加工产品的感官接受度,这成为制约青钱柳资源高值化利用的主要瓶颈之一。因此,开发既能保留青钱柳功能活性又能改善其风味特性的加工技术具有重要意义。
益生菌发酵是一种传统而有效的食品加工技术,通过微生物代谢活动,不仅能够转化原料中的活性成分,提高其生物利用度,还能产生丰富的风味物质,改善产品感官品质[3]。近年来,发酵技术在果蔬饮料及药食同源植物加工中的应用日益受到关注,其中酵母菌和乳酸菌是最常见的发酵菌株,常用于改善产品风味和品质[4]。酵母菌发酵主要产生醇类、酯类等挥发性风味物质,有助于形成果香和酒香特征[5]。乳酸菌发酵则可产生有机酸、胞外多糖等代谢产物,赋予产品酸爽口感和益生功能,同时促进酚类物质的释放与转化[6-7]。同时研究表明,酵母菌与乳酸菌的共发酵可产生协同效应,既能保持乳酸菌的益生特性,又能利用酵母菌的产香能力,从而获得品质更优的发酵产品[4]。
目前关于青钱柳发酵的研究尚处于起步阶段,主要对其多糖、黄酮、三萜、多酚等活性成分和功效进行研究[8-10]。对不同发酵方式对青钱柳发酵饮料品质与风味的研究仍较为缺乏,但在发酵方式的选择上,不同菌种及其组合方式对最终产品的品质和风味形成具有决定性影响。基于此,本研究在前期制备青钱柳发酵粉的工艺基础上[11],采用酿酒酵母和植物乳植杆菌单发酵及共发酵方式制备青钱柳发酵饮料,然后采用理化分析、电子鼻和顶空固相微萃取-气相色谱质谱联用(head space-solid phase microextraction-gas chromatography-mass spectrometry,HS-SPME-GC-MS)等方法,重点探究不同发酵方式对青钱柳发酵饮料理化指标、活性成分含量、抗氧化能力、挥发性化合物、游离氨基酸含量和感官评价的影响。本研究结果将为青钱柳发酵饮料的生产工艺、品质与风味控制及工业化生产提供理论依据与技术支持。
1 材料与方法
1.1 材料与试剂
青钱柳叶,九江市修水县;植物乳植杆菌(Lactiplantibacillus plantarum)、酿酒酵母(Saccharomyces cerevisiae),江西省食品发酵研究所菌种保藏中心;纤维素酶(100 000 U/g)、半纤维素酶(100 000 U/g),宁夏和氏璧生物技术有限公司;邻二氯苯、DPPH试剂盒、ABTS试剂盒,上海源叶生物科技有限公司;MRS 培养基、PDA 培养基,北京陆桥技术股份有限公司。
1.2 仪器与设备
5977A型GC-MS仪,美国安捷伦科技有限公司;50/30 μm DVB/CAR/PDMS萃取头、固相微萃取(solid phase microextraction,SPME)手动进样手柄,美国Supelco公司;PEN3电子鼻,德国埃尔森斯科技公司;Synergy H1酶标仪,美国伯腾仪器有限公司。
1.3 实验方法
1.3.1 青钱柳发酵饮料的制备
根据前期研究结果[11]培养菌种:将植物乳植杆菌接种到装有80 mL的MRS液体培养基的250 mL三角瓶后,恒温摇床(35 ℃,140 r/min)培养24 h;将酿酒酵母接种到装有80 mL PDA培养基的250 mL三角瓶后,恒温摇床(30 ℃,140 r/min)培养24 h。将培养完成的植物乳植杆菌和酿酒酵母的菌液按2∶1(质量比)混合后,制备成发酵用的混合菌种进行备用。
将干燥的青钱柳叶粉碎后过20目筛,得到青钱柳叶粉末,按照料液比1∶10(g∶mL)加入蒸馏水后装于250 mL三角瓶中混匀。按青钱柳叶细粉质量的0.8%添加复合酶(纤维素酶∶半纤维素酶=2∶1,质量比),在55 ℃、pH值5.0条件下,恒温水浴酶解3.0 h。经121 ℃、0.12 MPa高压灭菌20 min后冷却至室温,制备成青钱柳酶解液[11],此为未发酵青钱柳饮料,作为实验对照组(NF)。再通过不同发酵方式制备青钱柳发酵饮料,制备工艺如下:
酿酒酵母发酵组(YF):按照未发酵青钱柳酶解液总质量的6%接种酿酒酵母培养液,恒温摇床内(28 ℃,140 r/min)发酵5 d,每隔1 d取样1次,样品过滤后取上清液进行测定。
植物乳植杆菌发酵组(LF):按照未发酵青钱柳酶解液总质量的6%接种植物乳植杆菌培养液,恒温摇床内(37 ℃,140 r/min)发酵5 d,每隔1 d取样1次,样品过滤后取上清液进行测定。
共发酵组(CF):按照青钱柳酶解液总质量的6%接种混合菌(植物乳植杆菌∶酿酒酵母=2∶1,质量比)进行共菌发酵。每隔1 d取样1次,样品过滤后取上清液进行测定。
1.3.2 理化指标测定
pH值:使用pH计测定。
总酸含量:采用GB 12456—2021《食品安全国家标准 食品中总酸的测定(含第1号修改单)》中的第二法pH计电位滴定法进行测定。
可溶性固形物含量:参考GB/T 31121—2014《果蔬汁类及其饮料(含第1号修改单)》进行测定,可溶性固形物含量用糖度(°Bx)表示。
1.3.3 活性成分含量测定
多糖含量:参照SN/T 4260—2015《出口植物源食品中粗多糖的测定 苯酚-硫酸法》进行测定。
总黄酮含量:参照SN/T 4592—2016《出口食品中总黄酮的测定》进行测定。
总三萜含量:参照NY/T 3676—2020《灵芝中总三萜含量的测定 分光光度法》进行测定。
1.3.4 抗氧化能力测定
参考Jakubczyk等[12]的方法对青钱柳发酵饮料的抗氧化能力进行测定。
DPPH自由基清除能力:取0.5 mL青钱柳发酵饮料,10 000 r/min离心10 min后取上清液,按DPPH试剂盒说明书加入各试剂混匀,室温避光静置30 min,517 nm处测定其吸光值并计算其DPPH自由基清除率。
ABTS阳离子自由基清除能力:取0.5 mL青钱柳发酵饮料,10 000 r/min离心10 min后取上清液,参照ABTS试剂盒说明书加入各试剂混匀,室温避光静置6 min,734 nm处测定其吸光值并计算其ABTS阳离子自由基清除率。
1.3.5 挥发性成分的测定
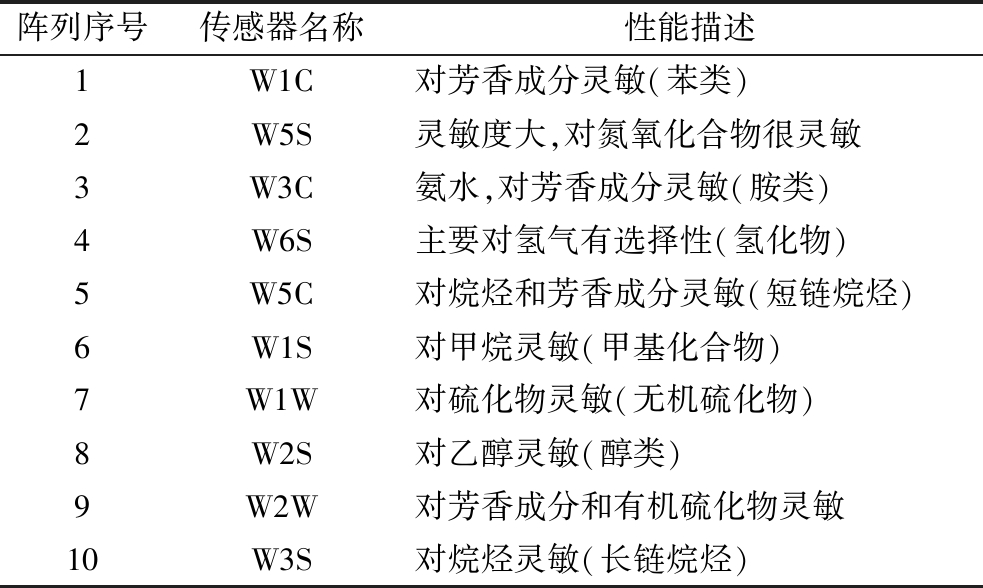
采用电子鼻对青钱柳发酵饮料的挥发性成分进行测定[13]。该设备由10条金属氧化物半导体型化学传感元件组成,每个传感元件对应的主要敏感物质如表1所示。称取5.0 mL样品于15 mL离心管中,3层保鲜膜封口,于恒温水浴锅中40 ℃孵育30 min,冷却至室温后进行测定,设置测试时间为150 s,气体流量为400 mL/min,冲洗时间为100 s。
表1 电子鼻化学传感器及其对应的敏感物质类型
Table 1 Electronic nose chemical sensors and their corresponding sensitive substance types
阵列序号传感器名称性能描述1W1C对芳香成分灵敏(苯类)2W5S灵敏度大,对氮氧化合物很灵敏3W3C氨水,对芳香成分灵敏(胺类)4W6S主要对氢气有选择性(氢化物)5W5C对烷烃和芳香成分灵敏(短链烷烃)6W1S对甲烷灵敏(甲基化合物)7W1W对硫化物灵敏(无机硫化物)8W2S对乙醇灵敏(醇类)9W2W对芳香成分和有机硫化物灵敏10W3S对烷烃灵敏(长链烷烃)
1.3.6 游离氨基酸含量的测定
参考史晴晴等[4]的方法,采用液相色谱法测定青钱柳发酵饮料中的游离氨基酸含量。
1.3.7 HS-SPME-GC-MS分析
参考陈天荣等[14]的方法,采用HS-SPME-GC-MS分析青钱柳发酵饮料中的挥发性化合物,使用邻二氯苯溶液(5 μL,0.10 μg/μL)作为内标物进行定量分析。质谱数据库采用NIST 14标准谱库进行化合物进行比较和鉴定,匹配度>80%的化合物予以保留。每个样品平行测定3次,以确保分析结果的重复性和可靠性。
1.3.8 感官评价
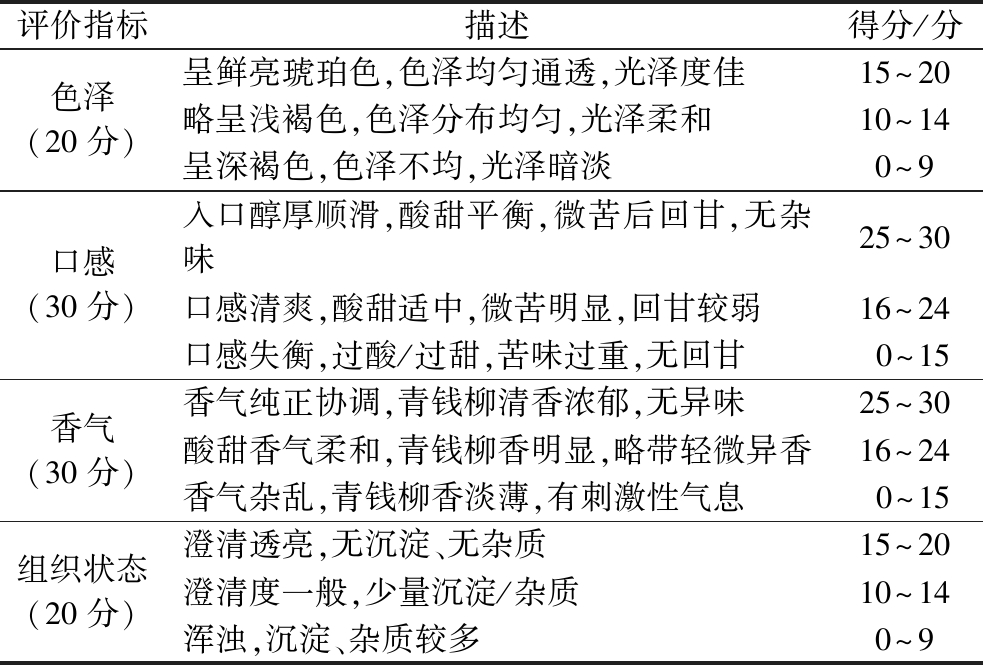
根据GB 7101—2022《食品安全国家标准 饮料》中饮料感官评价方法进行修改。邀请10位食品专业品鉴师对青钱柳发酵饮料进行感官评价,取20 mL混匀后的饮料置于品评杯中,对样品随机编号,室温下对样品的色泽、口感、香气、组织状态进行打分(总分100分),具体评分情况如表2所示。
表2 感官评价评分标准
Table 2 Sensory evaluation scoring criteria
评价指标描述得分/分色泽(20分)呈鲜亮琥珀色,色泽均匀通透,光泽度佳15~20略呈浅褐色,色泽分布均匀,光泽柔和10~14呈深褐色,色泽不均,光泽暗淡0~9口感(30分)入口醇厚顺滑,酸甜平衡,微苦后回甘,无杂味25~30口感清爽,酸甜适中,微苦明显,回甘较弱16~24口感失衡,过酸/过甜,苦味过重,无回甘0~15香气(30分)香气纯正协调,青钱柳清香浓郁,无异味25~30酸甜香气柔和,青钱柳香明显,略带轻微异香16~24香气杂乱,青钱柳香淡薄,有刺激性气息0~15组织状态(20分)澄清透亮,无沉淀、无杂质15~20澄清度一般,少量沉淀/杂质10~14浑浊,沉淀、杂质较多0~9
1.4 数据处理
所有实验数据均为3次平行的结果,数据以“平均值±标准差”表示。通过SPSS 27和Origin 2022软件分析实验数据和绘图,使用不同小写字母代表样本的显著性差异,P<0.05表示有显著性差异。
2 结果与讨论
2.1 理化指标
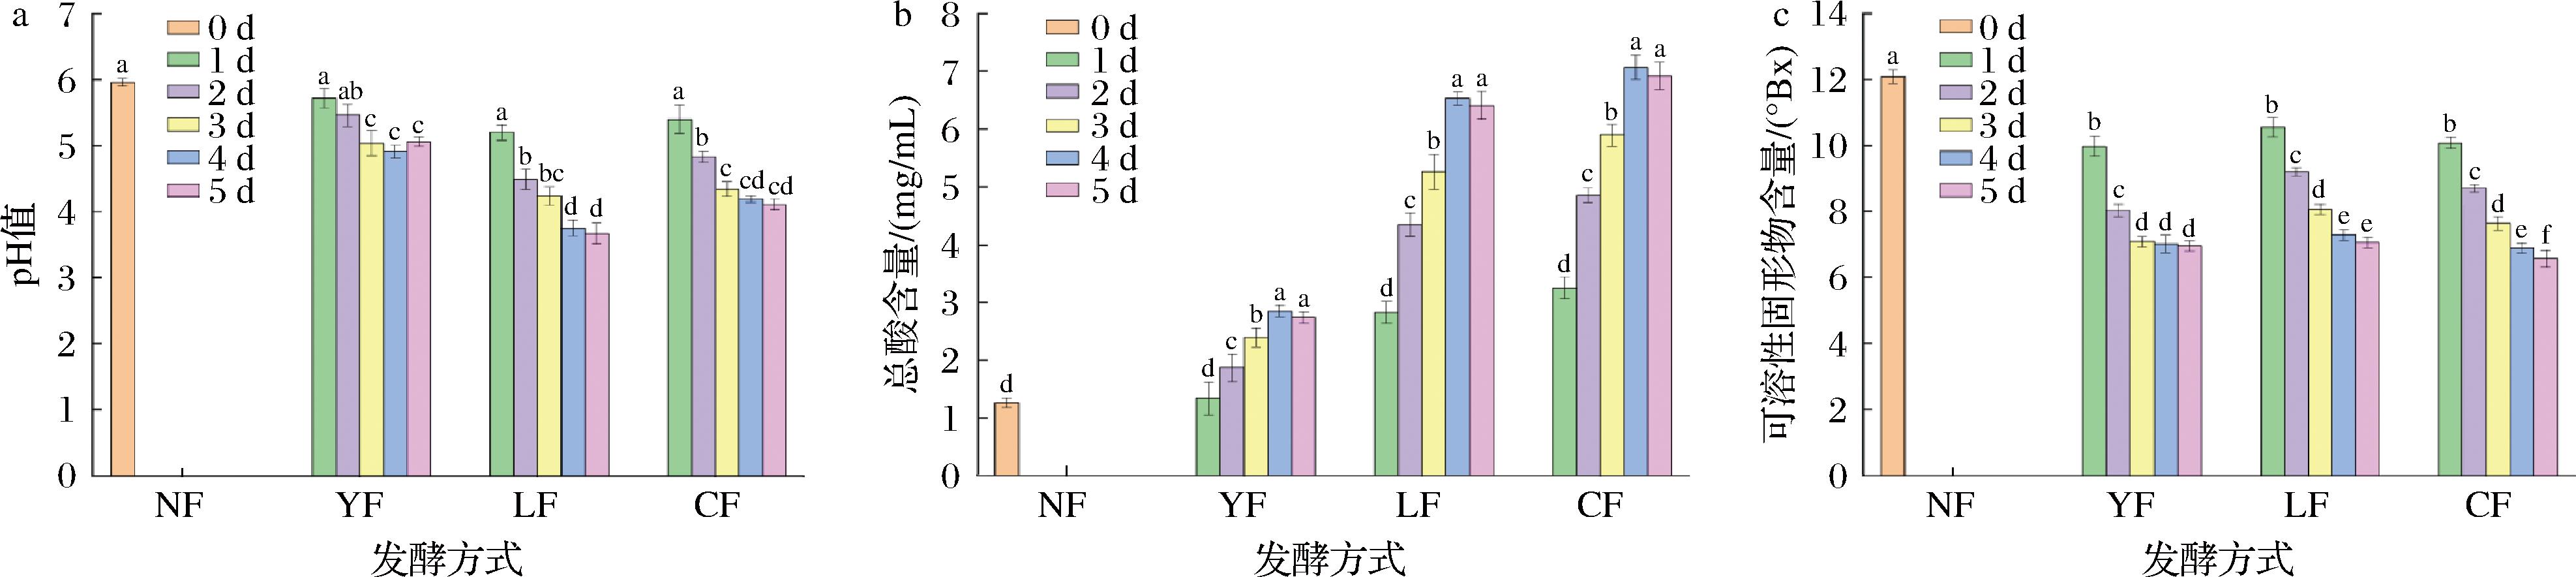
pH值和总酸是饮料发酵过程中影响风味的重要因素,研究表明,发酵饮料的最佳饮用pH值范围为3.6~4.9[15]。如图1-a所示,与NF组相比,3种青钱柳发酵饮料的pH值均随着发酵时间的延长呈现显著下降趋势(P<0.05),其总酸含量与pH值负相关,呈现上升趋势(图1-b)。与YF组相比,LF组和CF组在发酵3 d后便处于最佳饮用范围,而YF组5 d后pH值仍为5.06,下降幅度较小。这是因为植物乳植杆菌的产酸能力强于酵母菌,植物乳植杆菌将饮料中的糖类转化为乳酸等有机酸[16],而酿酒酵母主要进行醇类发酵[5],产酸能力相对较弱。
a-pH值;b-总酸含量;c-可溶性固形物含量
图1 不同发酵方式对青钱柳发酵饮料理化指标的影响
Fig.1 Effects of different fermentation methods on physicochemical indexes of fermented Cyclocarya paliurus beverage
注:不同小写字母表示差异显著(P<0.05)(下同)。
可溶性固形物是饮料发酵可利用的碳源来源,决定了发酵强度、产物的丰富度以及最终的糖酸比。由图1-c可知,与NF组相比,3种青钱柳发酵饮料的可溶性固形物含量均随着发酵时间的延长呈下降趋势,其中CF组下降幅度最为显著(P<0.05),从初始的10.08 °Bx降至5 d后的6.57 °Bx。这是因为在没有外来碳源添加的情况下,在发酵过程中,饮料体系内含有的糖类会被视为碳源物质,作为发酵底物被菌种的生长和繁殖所消耗,同时产生有机酸,导致可溶性固形物总体含量降低,进一步解释了青钱柳发酵饮料的pH值下降和总酸含量上升的原因[4]。
2.2 活性成分测定
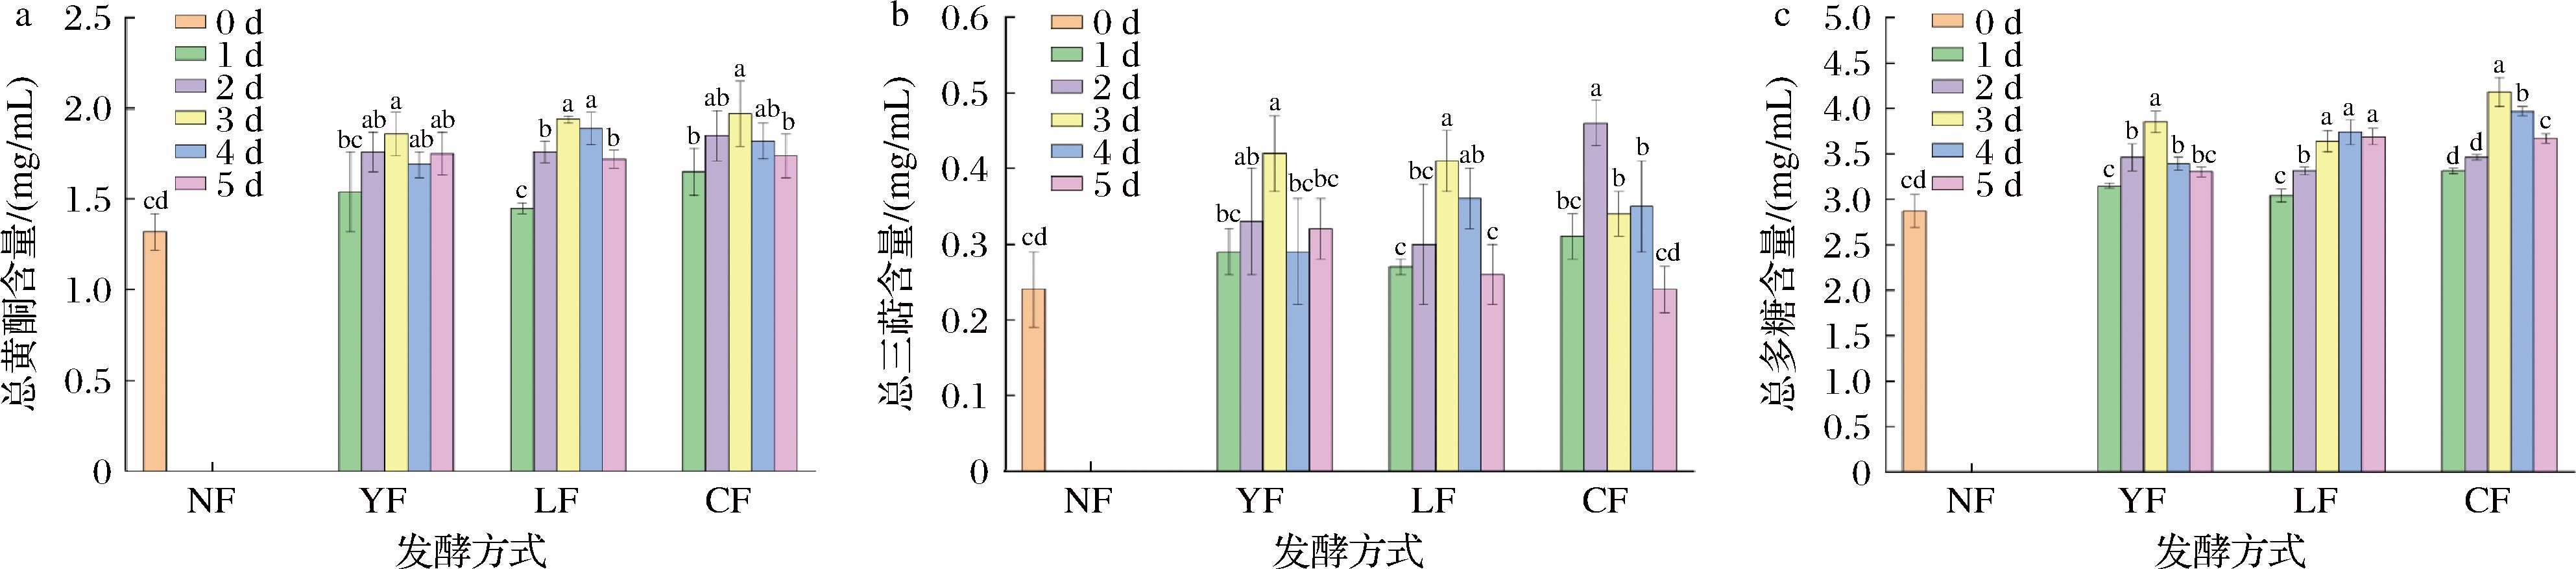
黄酮类化合物是青钱柳中含量较高的活性物质,其能有效清除体内过量的自由基,减少氧化应激对血管内皮细胞和胰岛细胞的损伤,延缓衰老。由图2-a可知,与NF组相比,3种青钱柳发酵饮料中的总黄酮含量均显著上升(P<0.05),其中CF组含量最高,这是由于复合酶(纤维素酶+半纤维素酶)处理已初步破坏细胞壁促进黄酮类化合物的释放,在发酵过程中微生物(植物乳植杆菌、酿酒酵母)继续分泌β-葡萄糖苷酶、纤维素酶等,将结合态的黄酮苷水解为可检测的黄酮苷元[11]。三萜类化合物是青钱柳发挥降血糖作用最为关键的成分之一。由图2-b可知,与NF组相比,3种青钱柳发酵饮料中的总三萜含量均显著上升(P<0.05),一方面是复合酶预酶解和微生物发酵协同作用,对青钱柳细胞壁的破坏最为彻底,使结合在细胞壁上的三萜类化合物大量游离释放;另一方面,酿酒酵母发酵产生的醇类物质是三萜类化合物的良好溶剂,可显著提高三萜的提取效率。青钱柳多糖是一类高分子质量的活性物质,是人体免疫调节与肠道健康的“滋养者”。由图2-c可知,与NF组相比,3种青钱柳发酵饮料中的总多糖含量均显著上升(P<0.05),其中CF组含量最高,这是纤维素酶和半纤维素酶将细胞壁中的纤维素、半纤维素水解为可溶性多糖片段[17],植物乳植杆菌、酿酒酵母继续分泌多糖水解酶,进一步释放结构性多糖所致。
a-总黄酮含量;b-总三萜含量;c-总多糖含量
图2 不同发酵方式对青钱柳发酵饮料活性成分的影响
Fig.2 Effects of different fermentation methods on active components of fermented C.paliurus beverage
由图2可知,青钱柳发酵饮料经酿酒酵母发酵、植物乳植杆菌发酵、共发酵后,总黄酮、总三萜和总多糖含量基本上在发酵3 d达到峰值(P<0.05)。随着发酵时间(4~5 d)的延长,其发酵体系中的总黄酮、总三萜、总多糖含量呈现下降的趋势,这与前人研究结果相一致[1,18-19]。这是因为当发酵体系中易利用的糖类耗尽后,植物乳植杆菌、酿酒酵母会开始利用黄酮、三萜、多糖等作为碳源进行生长代谢,导致其含量下降。
2.3 抗氧化能力测定
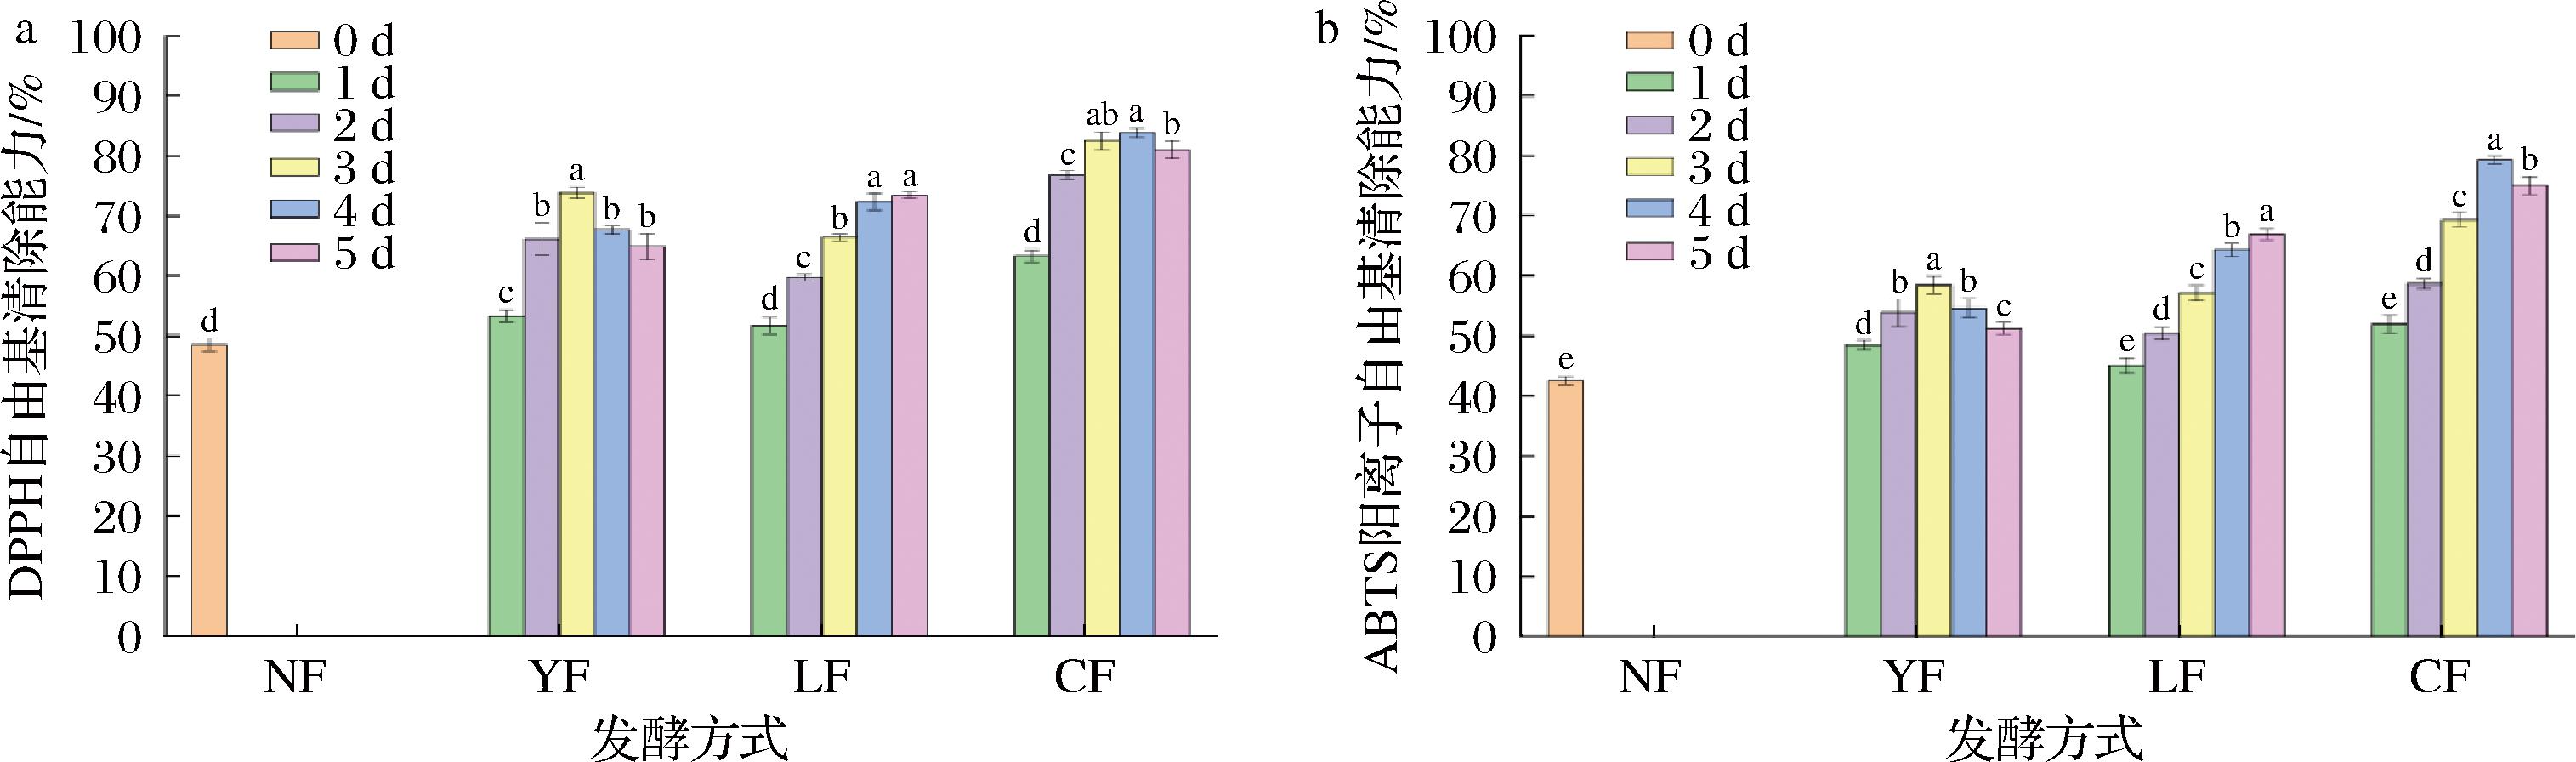
DPPH自由基与ABTS阳离子自由基清除能力是评价植物基发酵饮料抗氧化能力的常用指标。如图3所示,与NF组相比,3种发酵方式均显著提升了青钱柳发酵饮料的DPPH自由基与ABTS阳离子自由基清除能力(P<0.05),且随着发酵时间的延长,抗氧化活性先上升后趋于稳定。
a-DPPH自由基清除能力;b-ABTS阳离子自由基清除能力
图3 不同发酵方式对青钱柳发酵饮料抗氧化能力的影响
Fig.3 Effects of different fermentation methods on antioxidant capacity of fermented C.paliurus beverage
在发酵3 d,YF、LF、CF组的DPPH自由基清除率分别为73.85%、66.45%、82.51%,ABTS阳离子自由基清除率分别为58.48%、57.11%、69.37%。CF组在各时间点均表现出最高的抗氧化活性,显著优于单一菌种发酵(P<0.05)。这一结果与活性成分含量的变化趋势一致(图2),微生物发酵可促进黄酮、多糖及三萜类化合物的释放与转化,从而增强抗氧化能力[20]。植物乳植杆菌分泌的β-葡萄糖苷酶、酚酸脱羧酶等可水解黄酮糖苷,释放更具活性的苷元;酿酒酵母则通过醇类物质发酵增强细胞壁通透性,促进极性活性物质的溶出。共发酵体系实现了酶系互补与代谢协同,进一步提升活性成分的释放效率与转化程度,因此表现出最强的抗氧化能力。此外,发酵后期(4~5 d)抗氧化活性略有下降,可能与发酵体系中碳源耗尽后微生物代谢转向利用黄酮、三萜、多糖物质有关,导致活性成分含量降低。
2.4 电子鼻分析
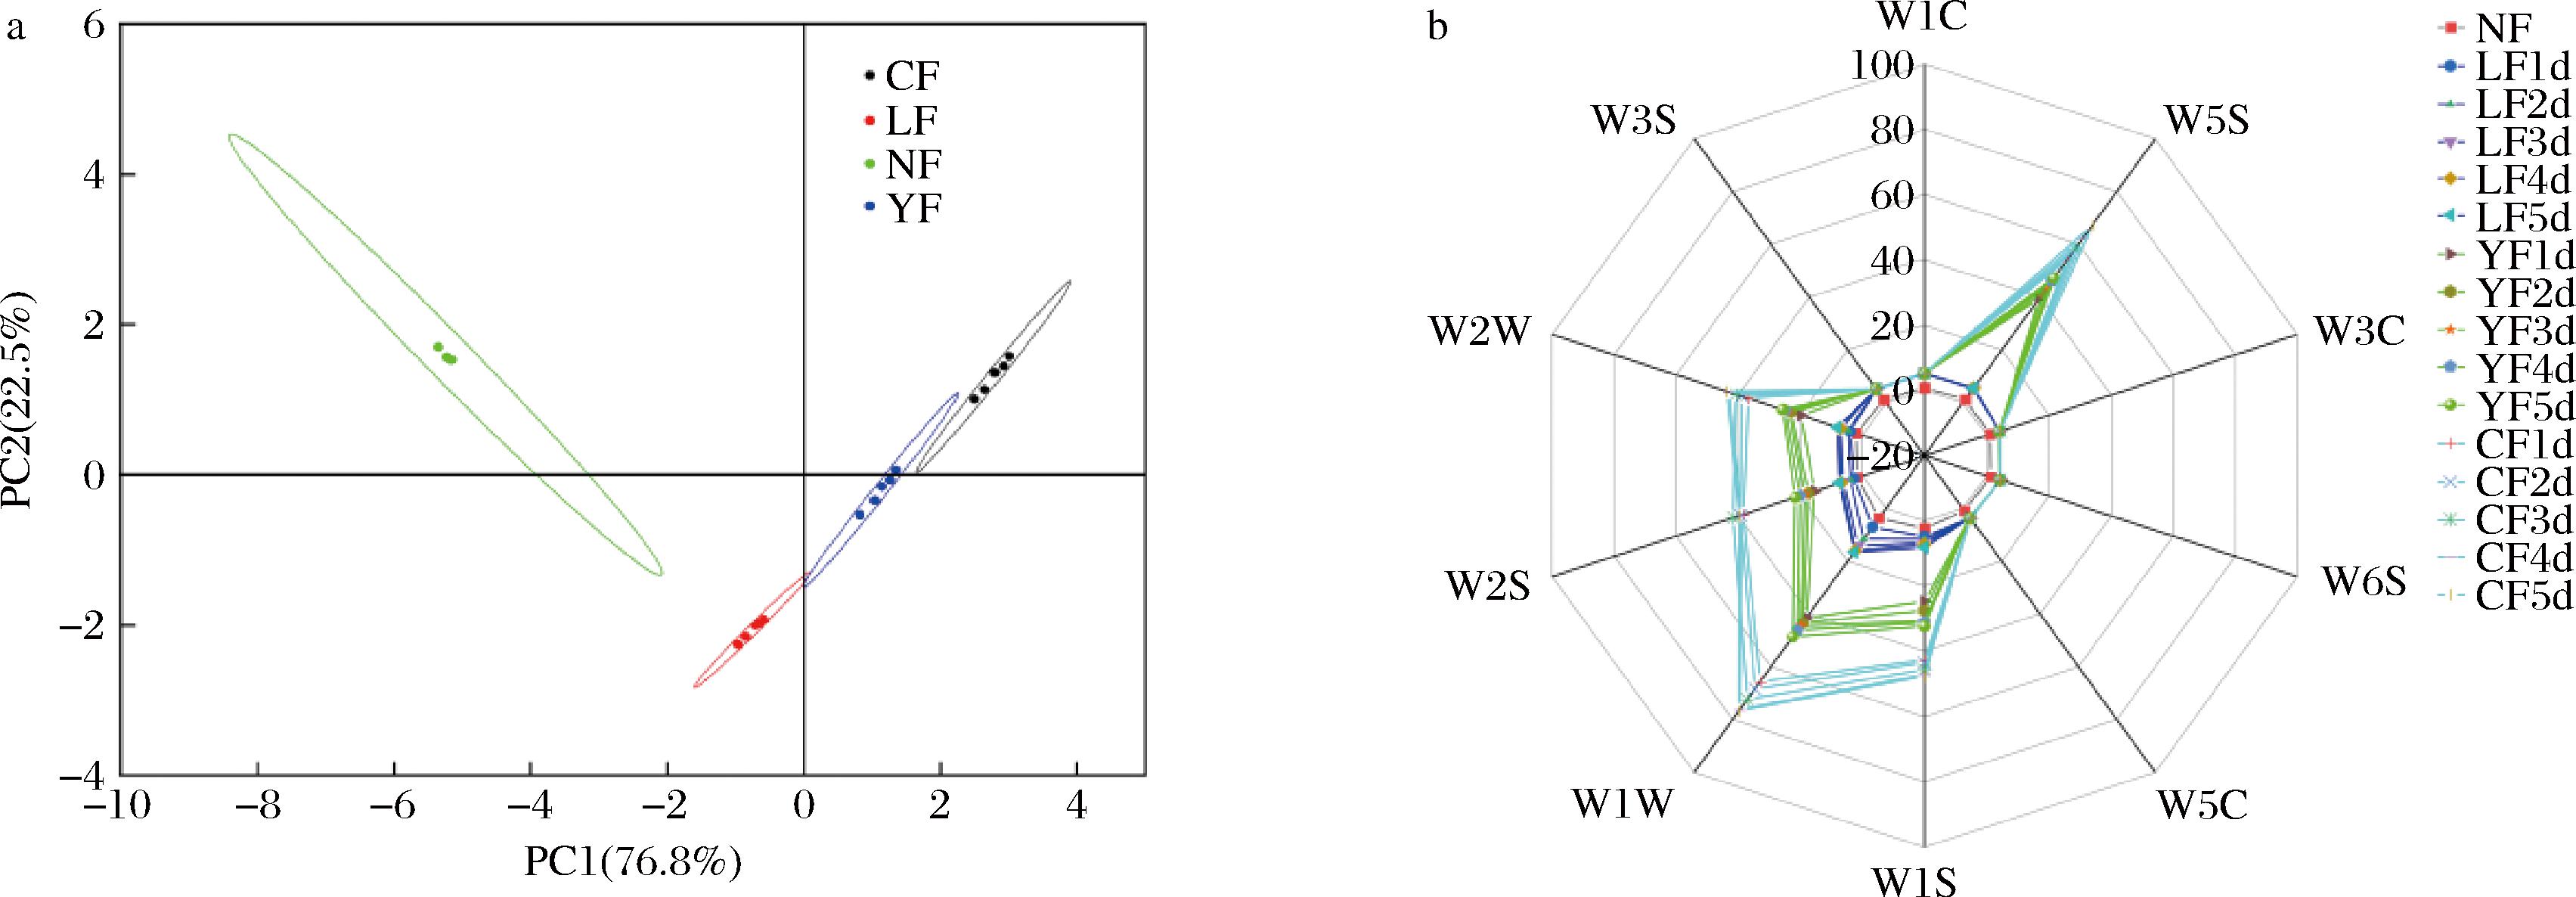
电子鼻技术可快速区分不同样品的整体气味特征。如图4-a所示,第一主成分(PC1)贡献率为76.8%,第二主成分(PC2)贡献率为22.5%,累计贡献率达99.3%,能够较好地解释样品间的风味差异。NF组与各发酵组在PC1方向上明显分离,表明青钱柳发酵饮料的整体风味发生了根本性改变。在PC1正半轴区域,YF组与CF组分布较为接近,说明CF组的风味轮廓更偏向于酿酒酵母发酵特征;LF组则在PC2方向上与YF组和CF组明显区分,体现出植物乳植杆菌发酵特有的风味属性。CF组并未位于LF组和YF组的几何中心位置,而是更靠近YF组,表明共发酵体系中酿酒酵母的产香代谢对整体风味贡献更为突出,同时植物乳植杆菌的代谢作用也在一定程度上调节了酸感与酯类组成,使CF组形成了兼具酿酒酵母发酵香气与植物乳杆菌发酵酸爽感的复合风味特征。
a-主成分分析图;b-电子鼻气味雷达图
图4 青钱柳发酵饮料的挥发性风味特征的雷达指纹分析和主成分分析
Fig.4 Radar fingerprint analysis and principal component analysis of volatile flavor characteristics of fermented C.paliurus beverage
由图4-b可知,发酵3 d时,传感器W1S(对甲烷灵敏)、W2S(对乙醇灵敏)和W1W(对硫化物灵敏)的响应值显著增强,尤以CF组最为明显,表明醇类、酯类及含硫化合物在发酵后含量上升。W1C、W3C传感器响应值在发酵后有所下降,说明部分芳香类物质在发酵过程中被代谢转化。与其他发酵时间相比,发酵第3天各传感器的响应值差异更为显著,说明发酵第3天是风味物质形成的关键时期。综上所述,结合图1~图3的发酵第3天的理化指标、活性成分与抗氧化能力均处于较高水平,综合考虑时间和材料成本,选取发酵3 d进行后续实验。
2.5 游离氨基酸含量的测定
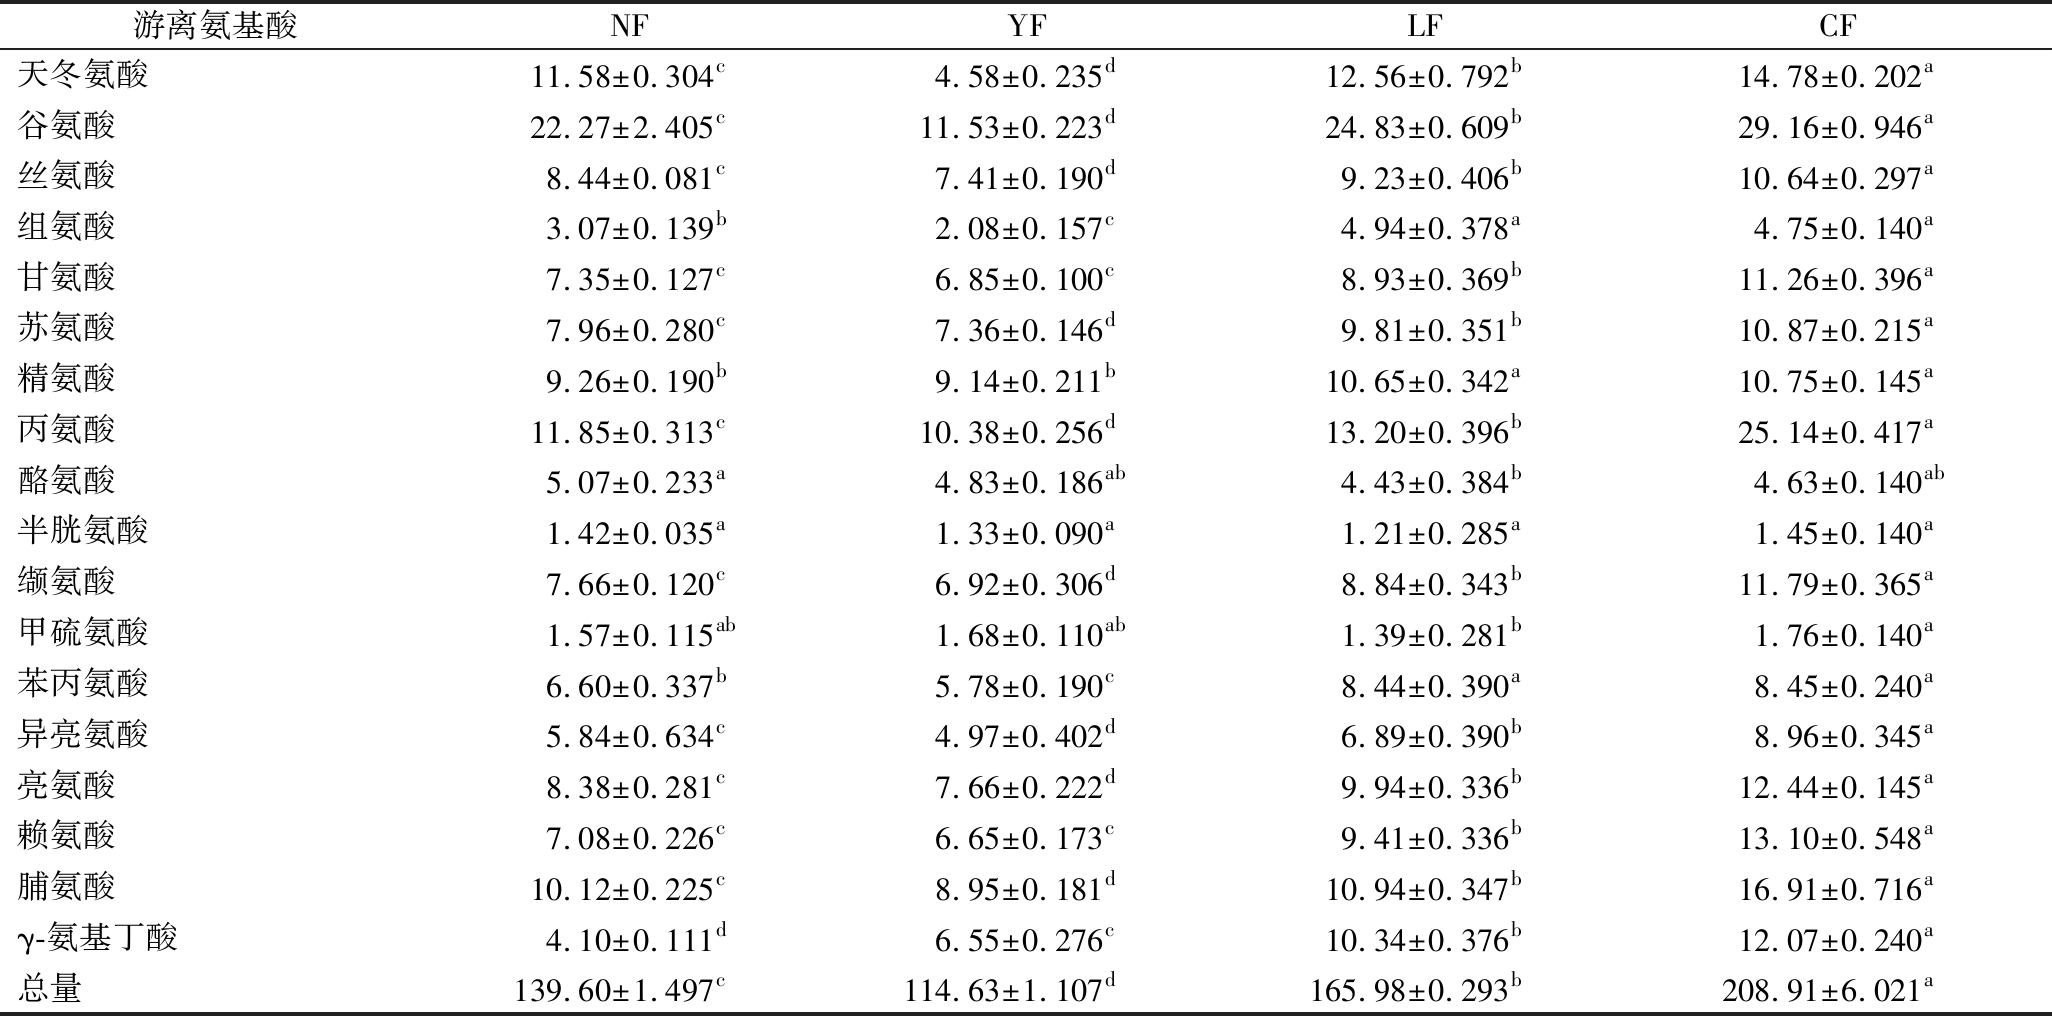
游离氨基酸是发酵饮料中重要的滋味物质与风味前体。如表3所示,NF组的总游离氨基酸含量为139.60 μg/mL,经酿酒酵母发酵后下降至114.63 μg/mL,而LF组与CF组则分别提升至165.98、208.91 μg/mL,CF组含量最高,较NF组提升49.65%。
表3 不同发酵方式青钱柳发酵饮料的游离氨基酸含量 单位:μg/mL
Table 3 Free amino acid content of fermented C.paliurus beverage with different fermentation methods
注:不同小写字母表示差异显著(P<0.05)。
游离氨基酸NFYFLFCF天冬氨酸 11.58±0.304c4.58±0.235d12.56±0.792b14.78±0.202a谷氨酸 22.27±2.405c11.53±0.223d24.83±0.609b29.16±0.946a丝氨酸 8.44±0.081c7.41±0.190d9.23±0.406b10.64±0.297a组氨酸 3.07±0.139b2.08±0.157c4.94±0.378a4.75±0.140a甘氨酸 7.35±0.127c6.85±0.100c8.93±0.369b11.26±0.396a苏氨酸 7.96±0.280c7.36±0.146d9.81±0.351b10.87±0.215a精氨酸 9.26±0.190b9.14±0.211b10.65±0.342a10.75±0.145a丙氨酸 11.85±0.313c10.38±0.256d13.20±0.396b25.14±0.417a酪氨酸 5.07±0.233a4.83±0.186ab4.43±0.384b4.63±0.140ab半胱氨酸1.42±0.035a1.33±0.090a1.21±0.285a1.45±0.140a缬氨酸 7.66±0.120c6.92±0.306d8.84±0.343b11.79±0.365a甲硫氨酸 1.57±0.115ab1.68±0.110ab1.39±0.281b1.76±0.140a苯丙氨酸 6.60±0.337b5.78±0.190c8.44±0.390a8.45±0.240a异亮氨酸 5.84±0.634c4.97±0.402d6.89±0.390b8.96±0.345a亮氨酸 8.38±0.281c7.66±0.222d9.94±0.336b12.44±0.145a赖氨酸 7.08±0.226c6.65±0.173c9.41±0.336b13.10±0.548a脯氨酸 10.12±0.225c8.95±0.181d10.94±0.347b16.91±0.716aγ-氨基丁酸4.10±0.111d6.55±0.276c10.34±0.376b12.07±0.240a总量139.60±1.497c114.63±1.107d165.98±0.293b208.91±6.021a
CF组中丙氨酸、脯氨酸、赖氨酸等呈味氨基酸含量均显著高于其他组(P<0.05),其中丙氨酸含量为25.14 μg/mL,为NF组的2.12倍。γ-氨基丁酸作为重要的功能性氨基酸,在NF组中仅为4.10 μg/mL,经植物乳植杆菌发酵后提升至10.34 μg/mL,CF组进一步提升至12.07 μg/mL,约为NF组的2.94倍。γ-氨基丁酸的富集与植物乳植杆菌的谷氨酸脱羧酶活性密切相关。共发酵体系中,酿酒酵母代谢产生的吡哆醛磷酸可作为辅因子增强γ-氨基丁酸合成途径[21]。此外,氨基酸总量的提升也反映了微生物蛋白酶对青钱柳蛋白的水解作用,释放出更多游离氨基酸。CF组中谷氨酸与天冬氨酸含量分别为29.16、14.78 μg/mL,显著高于其他组(P<0.05),为美拉德反应与Strecker降解提供了丰富前体,有利于后续风味物质的形成。
2.6 挥发性物质的分析
2.6.1 挥发性物质种类与含量分析
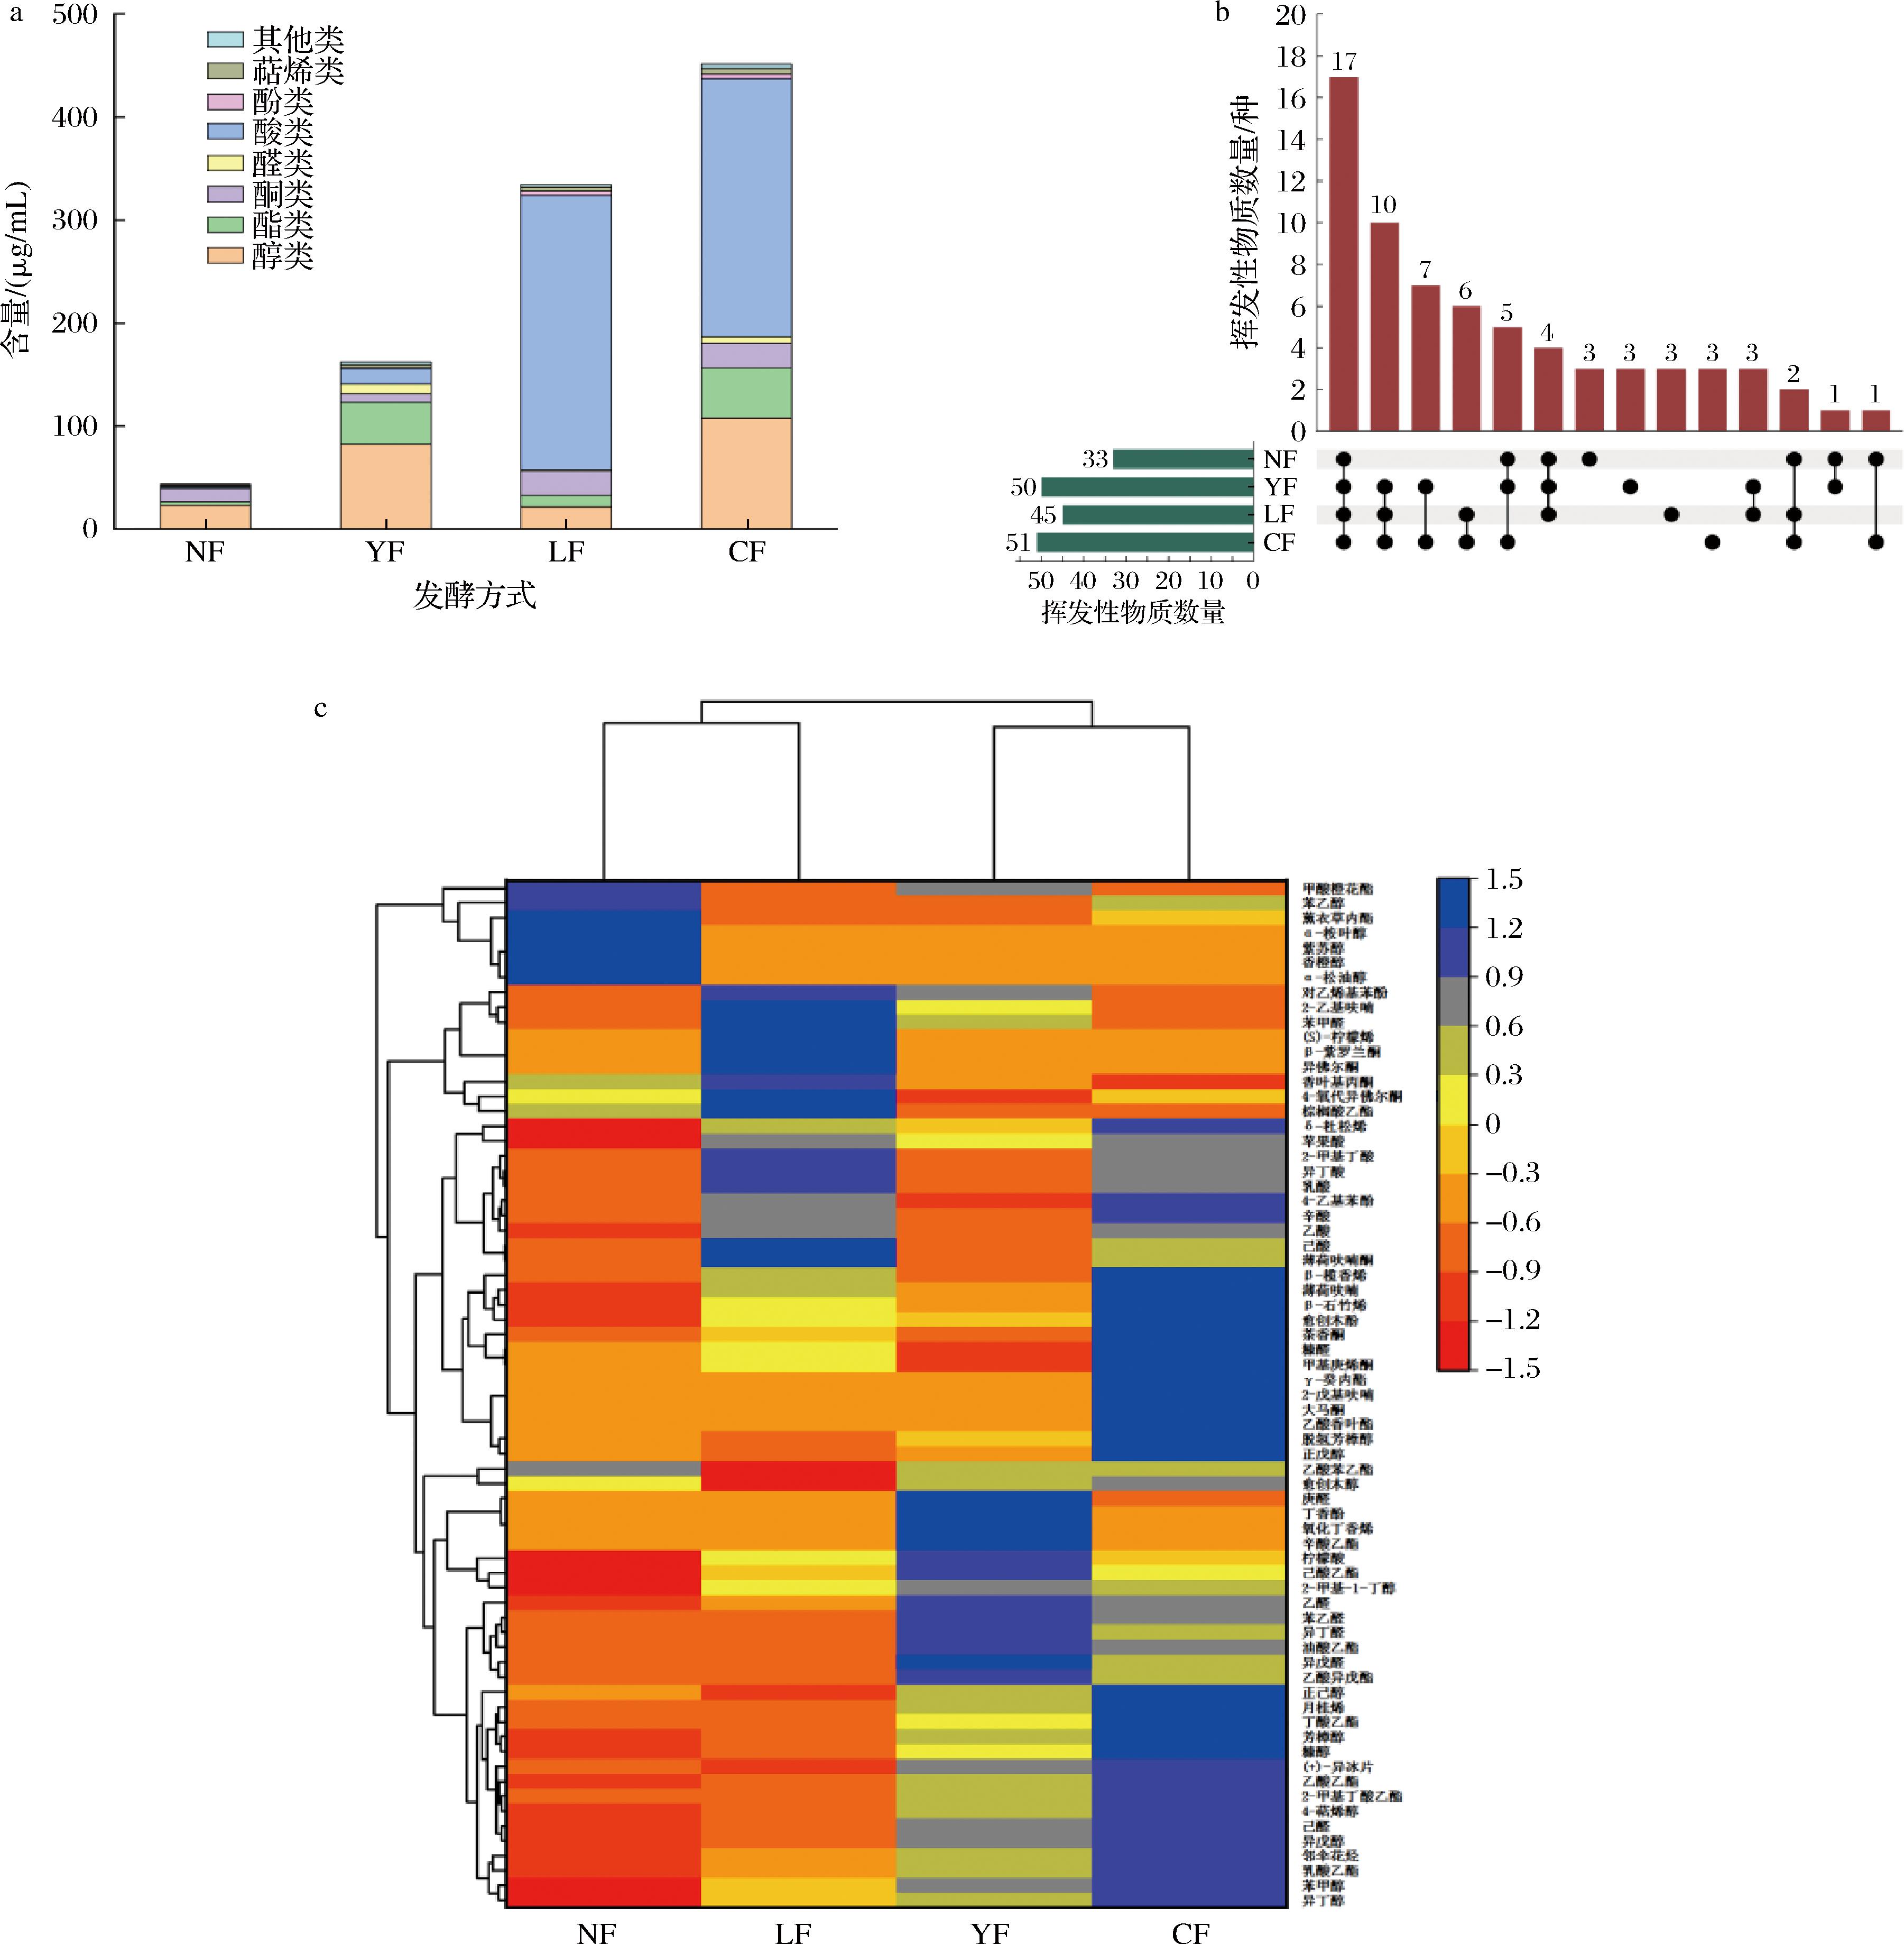
为探究不同发酵方式对青钱柳发酵饮料风味特征的影响,采用HS-SPME-GC-MS对4组样品中的挥发性物质进行检测,如电子版增强出版附表1所示(https://doi.org/10.13995/j.cnki.11-1802/ts.046761,下同),共鉴定出69种挥发性化合物,包括醇类17种、酯类14种、酮类8种、醛类8种、酸类8种、萜烯类6种、酚类4种及其他类4种。总挥发性物质含量分别为NF组43.666 μg/mL、YF组162.212 μg/mL、LF组334.353 μg/mL、CF组451.351 μg/mL,发酵后总含量显著提升,以CF组提升幅度最大,约为NF组的10.34倍。
从物质类别来看(图5-a),醇类与酯类是发酵后增加最显著的类别。YF组中醇类含量由未发酵的23.028 μg/mL升至82.657 μg/mL,酯类由3.457 μg/mL升至40.619 μg/mL,这与酵母菌的醇类发酵及酯化代谢密切相关。LF组中酸类含量上升至266.553 μg/mL,主要贡献者为乙酸(98.361 μg/mL)和乳酸(131.451 μg/mL)(表4),符合植物乳植杆菌的产酸代谢特征。CF组则兼具醇、酯、酸类物质的富集,总挥发性物质含量最高(451.351 μg/mL),表现出显著代谢协同效应。
a-挥发性物质类别及含量;b-Upset图;c-聚类热图
图5 不同发酵方式青钱柳发酵饮料的挥发性物质分析
Fig.5 Analysis of volatile compounds of fermented C.paliurus beverage with different fermentation methods
Upset图分析(图5-b)显示,CF组特有或与其他组共有的挥发性物质种类最多,说明共发酵显著拓展了风味物质谱系,与梁秀华等[22]报道的多菌种协同发酵桑叶茶结果一致。
对4个样品的挥发性化合物进行聚类分析,以热图表示。如图5-c所示,蓝色越深则代表挥发性化合物含量越高[4],发酵后样品的挥发性物质组成显著区别于NF组,其中以CF组的挥发性化合物含量最高。CF组与YF组、LF组在聚类上形成独立分支,说明其风味物质组成具有独特性,与主成分分析结果相互印证。
2.6.2 香气活性值(odor activity value,OAV)分析
不同发酵方式对饮料风味的影响不仅与所含挥发性化合物含量有关,还与其阈值有关,OAV>1的挥发性化合物通常被认为是赋予发酵饮料独特风味的关键物质[23]。如电子版增强出版附表2所示,NF组中有7种OAV>1的物质,主要为香叶基丙酮(40.38)、α-松油醇(20.37)等,呈现果实、草本与木质香气。YF组中新增丁酸乙酯(250.75)、2-甲基丁酸乙酯(383.38)、己酸乙酯(44.83)等酯类物质,赋予果香、甜香特征。LF组中异佛尔酮(97.22)、β-紫罗兰酮(56.00)等酮类物质OAV显著升高,同时乙酸、乳酸等酸类物质赋予酸爽口感。CF组中关键风味物质种类最为丰富,其中大马酮(1 380.00)、丁酸乙酯(549.00)、2-甲基丁酸乙酯(520.13)等OAV极高,赋予强烈花果香与甜味。OAV分析表明,共发酵体系能够综合酿酒酵母与植物乳植杆菌的代谢优势,形成更为复杂、协调的风味特征。
2.6.3 主成分分析
为了更好地区分4个样品之间的风味差异,对4个样品所有的风味物质和OAV>1的关键风味物质进行主成分分析。由图6-a可知,PC1贡献率为54.5%,PC2贡献率为25.7%,累计贡献率达80.2%,能够解释4个样品之间的差异性。NF组、LF组虽位于PC1负向区域,但也明显分离;YF组、CF组则分布于正向区域,表明发酵对风味特征的影响显著。CF组与YF组、LF组在PC2方向进一步分离,显示出其独特的风味属性。
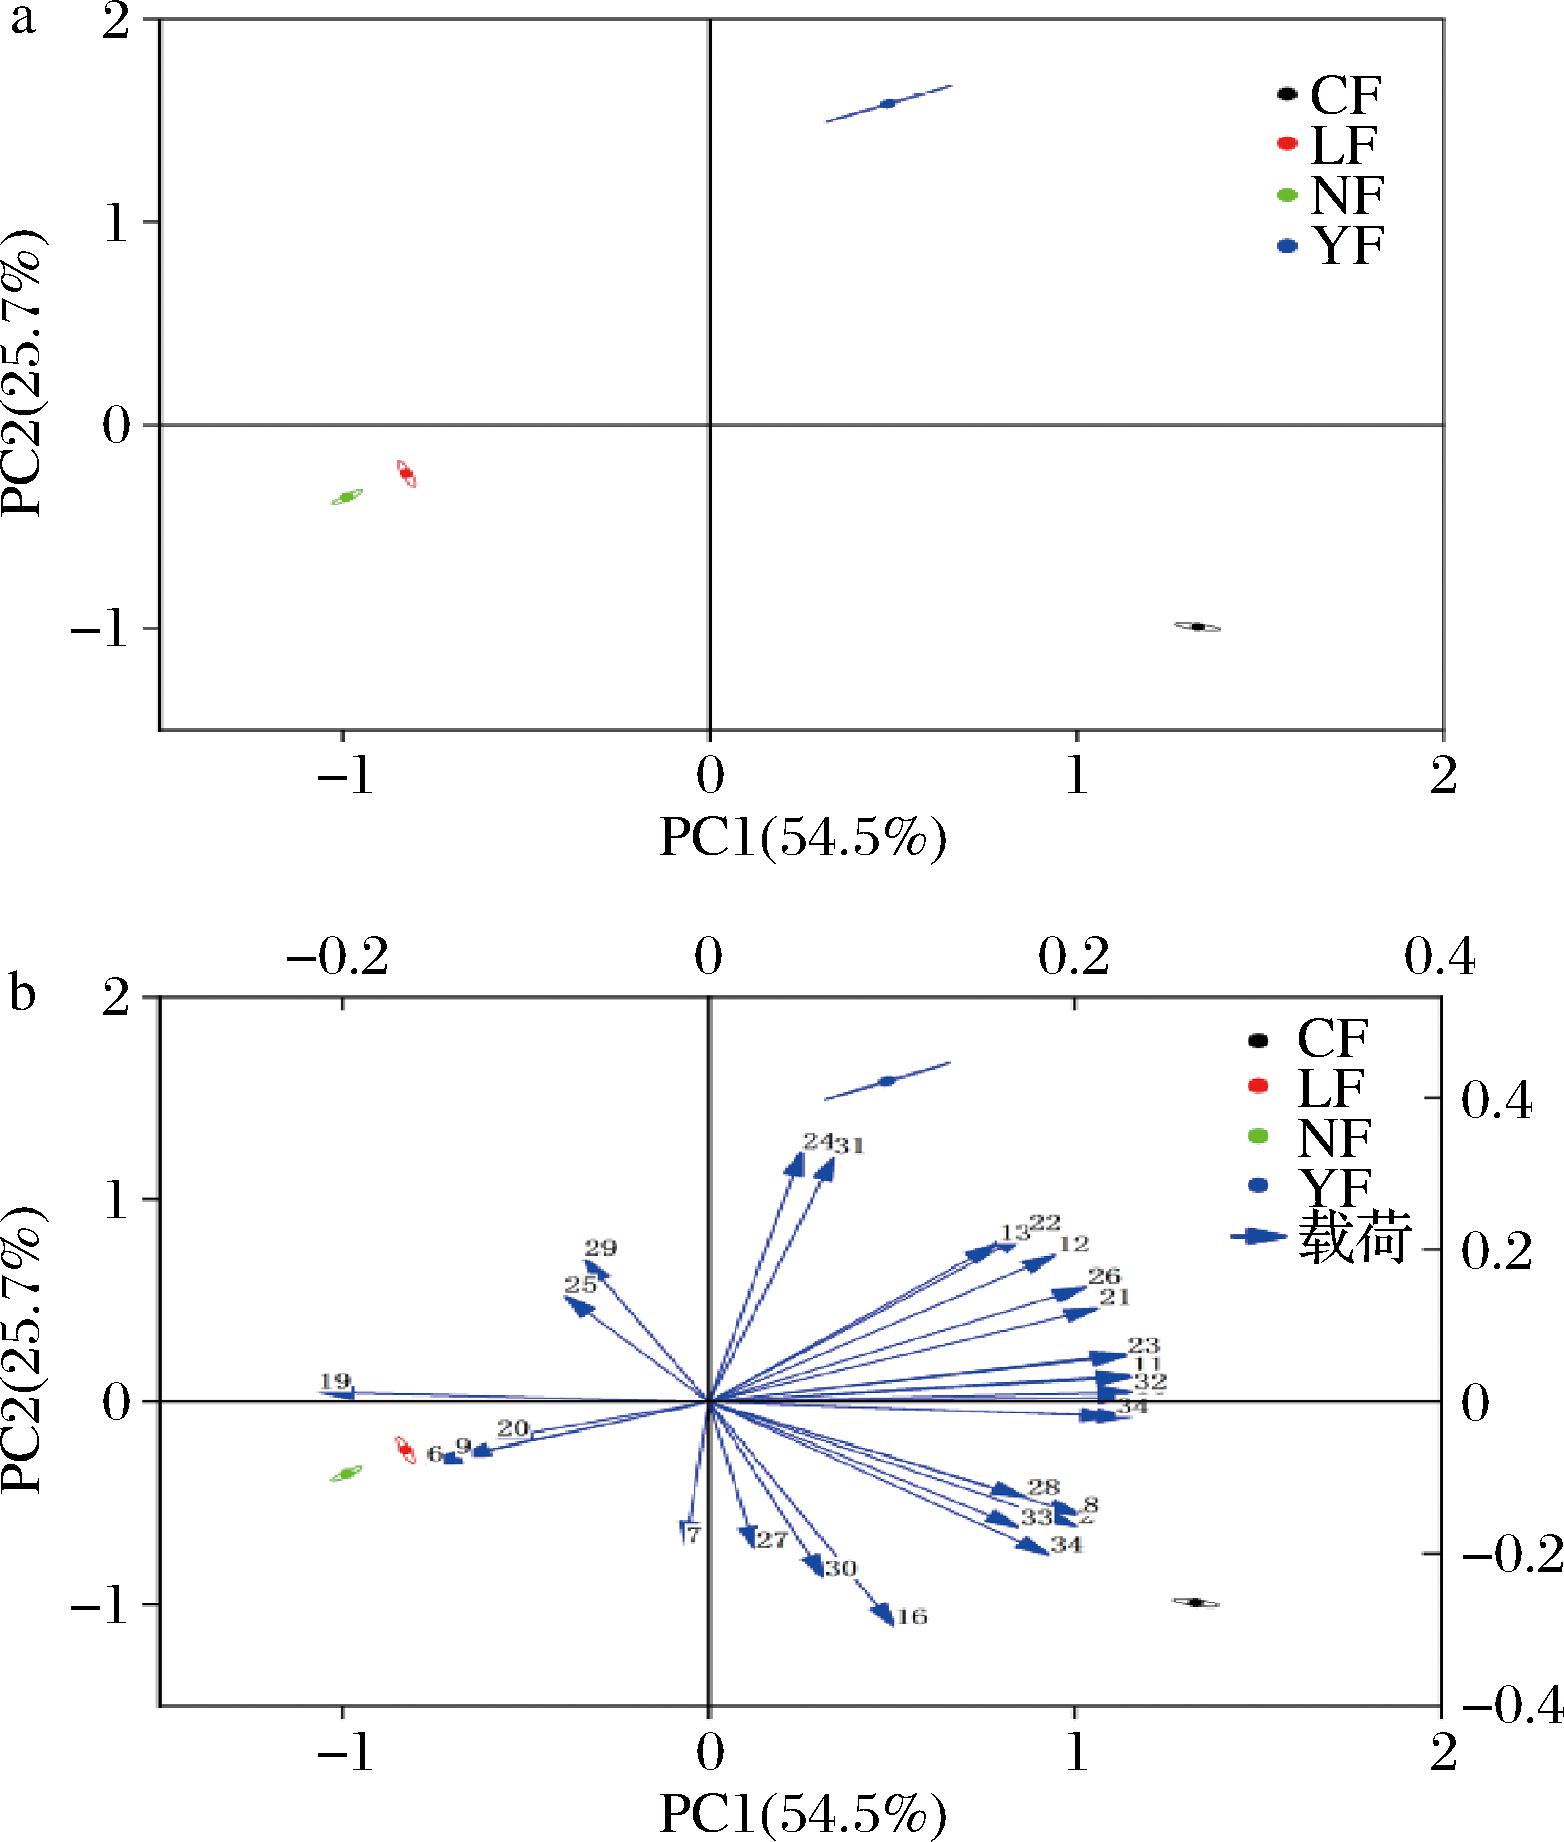
a-挥发性物质主成分分析得分图;b-OAV>1物质主成分分析双图
图6 不同发酵方式青钱柳发酵饮料的挥发性物质主成分分析
Fig.6 Principal component analysis of volatile compounds of fermented C.paliurus beverage with different fermentation methods
由图6-b可知,CF组位于PC1正半轴且靠近PC2原点区域,说明其关键风味物质既包含了酿酒酵母代谢产生的酯类(如丁酸乙酯、2-甲基丁酸乙酯),又保留了部分植物乳植杆菌相关的酸类和醇类,同时还具有较高含量的芳樟醇、苯乙醇等特征香气成分。这与共发酵体系能够综合2种菌种代谢优势的结论一致。而NF组则远离所有发酵组,位于PC1负半轴,表明其风味组成与发酵样品差异显著,主要以原有萜烯类物质为主,缺乏发酵产生的酯类和酸类物质。
2.7 感官评价
感官评价是衡量发酵饮料品质的重要依据。由图7可知,NF组感官评分为28分,主要表现为苦味明显、青草气重,接受度较低。YF组评分为57分,果香与酒香明显,但酸味口感不足。LF组评分为70分,酸味协调,但香气层次略显单一。CF组评分最高,达86分,色泽鲜亮、香气协调、酸甜适中、回甘明显,整体接受度最佳。
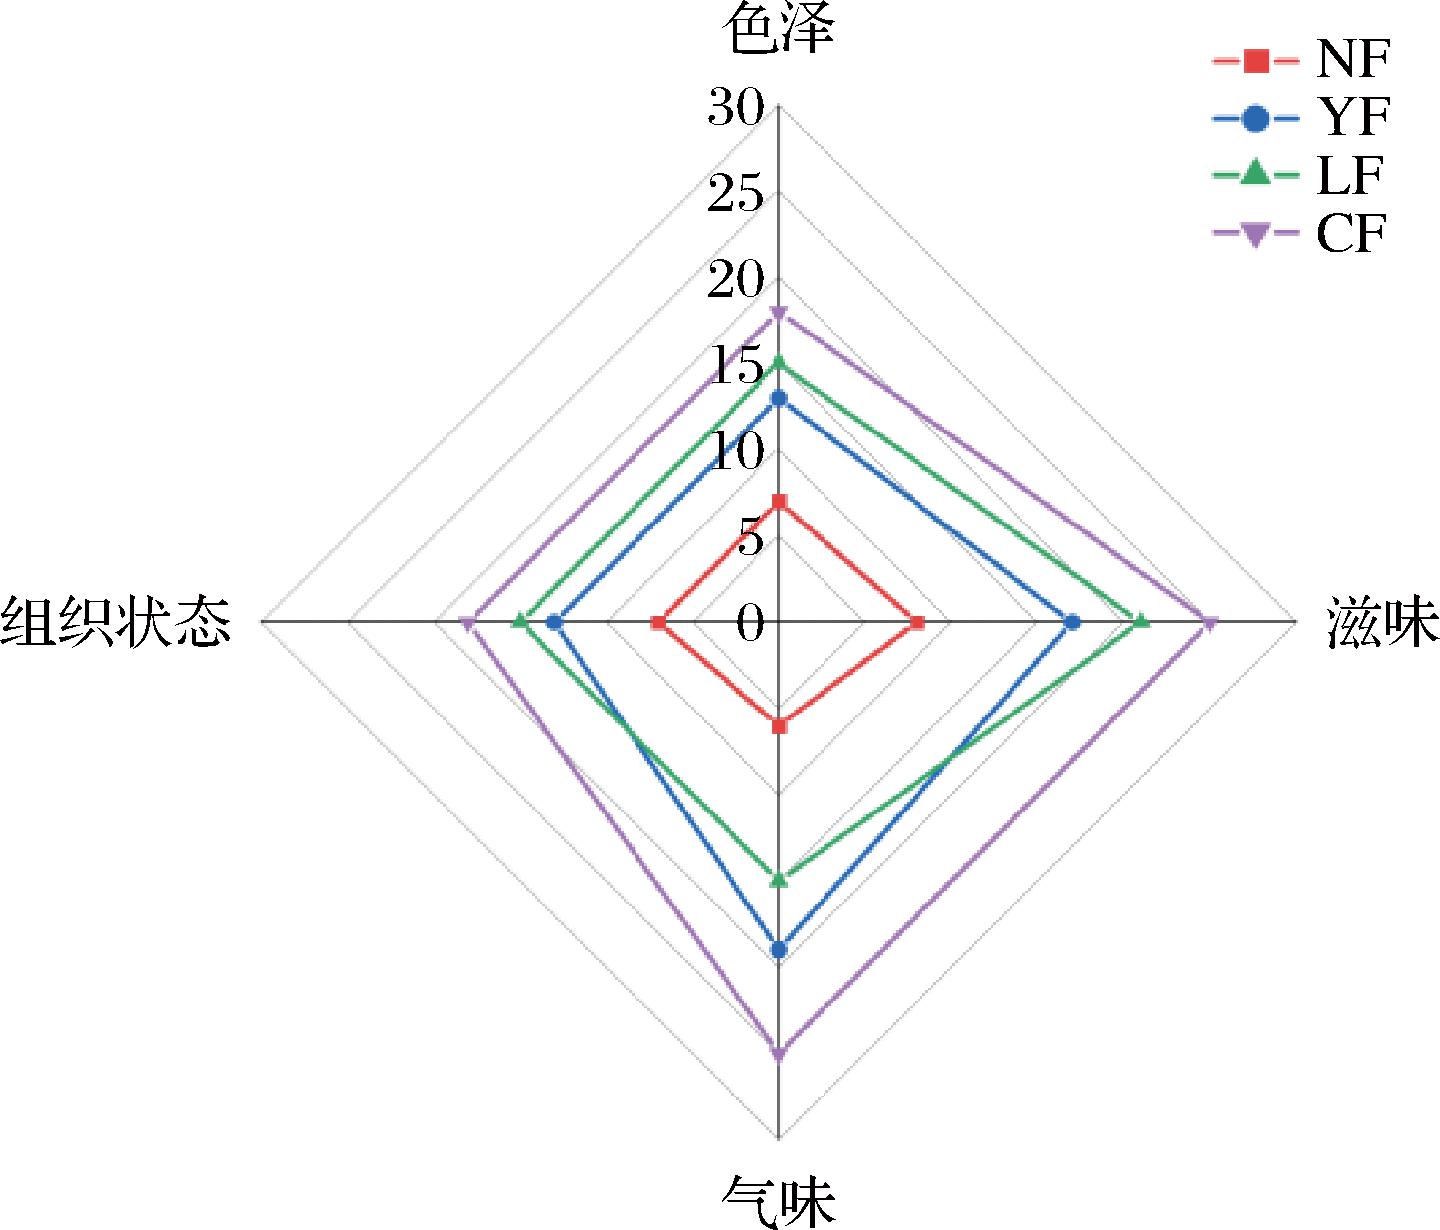
图7 不同发酵方式青钱柳发酵饮料的感官评分
Fig.7 Sensory evaluation scores of fermented C.paliurus beverage with different fermentation methods
这一结果与理化指标、活性成分及挥发性物质分析等结果高度一致。CF组中丰富的酯类、醇类与酸类物质形成了良好的风味平衡,同时较高的黄酮、三萜含量与抗氧化活性也增强了产品的功能属性。感官评价进一步验证了共发酵在提升青钱柳发酵饮料综合品质方面具有明显的优势。
3 结论
本研究基于前期的研究成果,以青钱柳为原料,系统比较了未发酵、酿酒酵母发酵、植物乳植杆菌发酵及共发酵对青钱柳发酵饮料理化品质、活性成分含量、抗氧化能力、挥发性风味物质、游离氨基酸含量及感官品质的影响。结果表明,发酵后的青钱柳发酵饮料的pH值下降、总酸含量上升、可溶性固形物含量降低,共发酵组指标变化最为显著,其pH值维持在适宜饮用范围(3.6~4.9);发酵可显著提升青钱柳发酵饮料中的总黄酮、总三萜、总多糖含量及DPPH自由基、ABTS阳离子自由基清除能力,其效果以共发酵组最优;共发酵组总游离氨基酸含量最高(208.91 μg/mL),γ-氨基丁酸含量为12.07 μg/mL,显著优于单一发酵组;共发酵组挥发性物质总含量最高(451.351 μg/mL),其中大马酮、丁酸乙酯、2-甲基丁酸乙酯等关键风味物质贡献突出;共发酵组感官评分最高(86分),色泽、滋味、气味、组织状态协调性最佳。综上所述,酿酒酵母与植物乳植杆菌共发酵可有效改善青钱柳发酵饮料的风味品质与功能特性,是一种具有良好应用前景的加工方式,可为青钱柳发酵饮料的工业化生产提供理论依据与技术参考。
[1] 巢瑾, 罗茜, 李佳莲, 等.冠突散囊菌发酵青钱柳前后特征风味与挥发性物质的变化[J].食品与发酵工业, 2023, 49(9):57-64;81.Chao J, Luo Q, Li J L, et al.Variation of characteristic flavor and volatile substances in Cyclocarya paliurus fermented with Eurotium cristatum[J].Food and Fermentation Industries, 2023, 49(9):57-64;81.
[2] 陈曼雨, 顾志良.青钱柳调节糖脂代谢活性成分及作用机制的研究进展[J].食品工业科技, 2021, 42(11):382-389.Chen M Y, Gu Z L.Research progress of the active components and mechanism of Cyclocarya paliurus in regulating glucolipid metabolism[J].Science and Technology of Food Industry, 2021, 42(11):382-389.
[3] 蒋雯杰, 叶箭, 成林, 等.乳酸菌发酵植物基饮料中营养物质及风味物质的研究进展[J].食品与发酵工业, 2026, 52(1):376-386.Jiang W J, Ye J, Cheng L, et al.Progress on nutrients and flavor substances in lactic acid bacteria fermented plant-based beverages[J].Food and Fermentation Industries, 2026, 52(1):376-386.
[4] 史晴晴, 范柳萍, 沈选举, 等.不同发酵方式对玫瑰花发酵饮料品质和风味的影响[J].食品与发酵工业, 2025, 51(22):304-314.Shi Q Q, Fan L P, Shen X J, et al.Influence of different fermentation methods on quality and flavor of rose fermented beverage[J].Food and Fermentation Industries, 2025, 51(22):304-314.
[5] Li N, Wang Q Q, Xu Y H, et al.Increased glycosidase activities improved the production of wine varietal odorants in mixed fermentation of P.fermentans and high antagonistic S.cerevisiae[J].Food Chemistry, 2020, 332:127426.
[6] 李生帅, 钟秋, 姚瑶, 等.蔬菜乳酸发酵及其活性成分研究进展[J].西华大学学报(自然科学版), 2024, 43(4):24-36.Li S S, Zhong Q, Yao Y, et al.Advances in the study of vegetable lactic acid fermentation and its active components[J].Journal of Xihua University (Natural Science Edition), 2024, 43(4):24-36.
[7] Zhang L S, Li A P, Liu H M, et al.Effects of lactic acid bacteria fermentation on the release and biotransformation of bound phenolics in ma bamboo shoots (Dendrocalamus latiflorus Munro)[J].Foods, 2025, 14(15):2573.
[8] 应瑞峰, 黄梅桂, 王耀松, 等.超声波微波协同提取青钱柳超微粉多糖及活性研究[J].食品研究与开发, 2017, 38(23):32-37.Ying R F, Huang M G, Wang Y S, et al.Ultrasonic-microwave synergistic extraction and activity of polysaccharides from Cyclocarya paliurus[J].Food Research and Development, 2017, 38(23):32-37.
[9] Lei-Xiong, Hu W B, Yang Z W, et al.Enzymolysis-ultrasonic assisted extraction of flavanoid from Cyclocarya paliurus (Batal) Iljinskaja:HPLC profile, antimicrobial and antioxidant activity[J].Industrial Crops and Products, 2019, 130:615-626.
[10] Wu T, Shen M Y, Yu Q, et al.Cyclocarya paliurus polysaccharide improves metabolic function of gut microbiota by regulating short-chain fatty acids and gut microbiota composition[J].Food Research International, 2021, 141:110119.
[11] 张良, 刘媛洁, 严美婷, 等.响应面法优化酶菌协同制备高抗氧化活性青钱柳发酵粉工艺[J].食品工业科技, 2022, 43(19):202-210.Zhang L, Liu Y J, Yan M T, et al.Response surface methodology to optimize the process of fermentation powder of Cyclocarya paliurus with high antioxidant activity by using enzyme-microorganisms synergy method[J].Science and Technology of Food Industry, 2022, 43(19):202-210.
[12] Jakubczyk K, Melkis K, Janda-Milczarek K, et al.Phenolic compounds and antioxidant properties of fermented beetroot juices enriched with different additives[J].Foods, 2024, 13 (1):102.
[13] 叶剑, 吴学凤, 穆冬冬, 等.不同乳酸菌发酵对浓缩梨汁营养物质及挥发性风味物质的影响[J].食品工业科技, 2024, 45(23):84-93.Ye J, Wu X F, Mu D D, et al.Influence of different lactic acid bacteria fermentations on the nutritional substance and volatile flavor compounds of concentrated pear juice[J].Science and Technology of Food Industry, 2024, 45(23):84-93.
[14] 陈天荣, 张玉红.不同菌种对芫根发酵液风味物质及抗氧化性能的影响[J].食品与发酵工业, 2024, 50(16):211-220.Chen T R, Zhang Y H.Enhancing flavor compounds and antioxidant properties:Impact of diverse bacterial strains on fermentation broth of Brassica rapa L[J].Food and Fermentation Industries, 2024, 50(16):211-220.
[15] 杨欣, 相君, 邓梅, 等.葛根乳酸菌饮料发酵工艺优化及其品质分析[J].中国酿造, 2024, 43(7):196-203.Yang X, Xiang J, Deng M, et al.Optimization of fermentation process and quality analysis of Pueraria lobate lactic acid bacteria beverage[J].China Brewing, 2024, 43(7):196-203.
[16] Erem E, Kilic-Akyilmaz M.The role of fermentation with lactic acid bacteria in quality and health effects of plant-based dairy analogues[J].Comprehensive Reviews in Food Science and Food Safety, 2024, 23(4):e13402.
[17] 刘媛洁, 张良.酶菌协同发酵产青钱柳多糖工艺优化[J].中国酿造, 2022, 41(6):217-223.Liu Y J, Zhang L.Optimization for production process of polysaccharide from Cyclocarya paliurus by co-fermentation with enzyme and microbe[J].China Brewing, 2022, 41(6):217-223.
[18] 鲁青, 严美婷, 张超凤, 等.微生物发酵技术同步提取青钱柳多糖和黄酮[J].食品与发酵工业, 2019, 45(11):113-117.Lu Q, Yan M T, Zhang C F, et al.Synchronous extraction of Cyclocarya paliurus polysaccharides and flavonoids by microbial fermentation[J].Food and Fermentation Industries, 2019, 45(11):113-117.
[19] Wu C Y, Li T L, Qi J, et al.Effects of lactic acid fermentation-based biotransformation on phenolic profiles, antioxidant capacity and flavor volatiles of apple juice[J].LWT, 2020, 122:109064.
[20] Tang W, Lin L H, Xie J H, et al.Effect of ultrasonic treatment on the physicochemical properties and antioxidant activities of polysac charide from Cyclocarya paliurus[J].Carbohydrate Polymers, 2016,151:305-312.
[21] Huang J, Fang H, Gai Z C, et al.Lactobacillus brevis CGMCC 1306 glutamate decarboxylase:Crystal structure and functional analysis[J].Biochemical and Biophysical Research Communications,2018,503(3):1703-1709.
[22] 梁秀华, 何秀玲, 王咪, 等.多菌种协同发酵对桑叶茶风味品质及生物活性成分的影响[J].食品与发酵工业,2026,52(10):222-229.Liang X H, He X L, Wang M, et al.Effects of multi-strain synergistic fermentation on flavor quality and bioactive components of mulberry leaf tea[J].Food and Fermentation Industries,2026,52(10):222-229.
[23] 易子程, 常腾文, 司慧宁, 等.本土非酿酒酵母对混合发酵威代尔冰酒风味及品质影响的比较分析[J].食品与发酵工业, 2025, 51(12):215-225.Yi Z C, Chang T W, Si H N, et al.Comparative analysis of impact of local non-Saccharomyces yeasts on flavor and quality of mixed-fermented Vidal ice wine[J].Food and Fermentation Industries, 2025, 51(12):215-225.
[24] Van Gemert L J. Compilations of odour threshold values in air, water and other media[M]. Utrecht: Oliemans Punter &Partners BV, 2003.