苞谷酸又称玉米鲊辣椒,是一种以玉米粉与鲜红辣椒为主要原料,经混合、搅拌、密封和自然发酵等工艺制成的传统植物性发酵食品,广泛分布于湖南湘西以及贵州、广西等地的部分少数民族地区[1]。其制品色泽红亮、香气浓郁,质地湿润松散,常作为佐餐小菜或调味食品,兼具地方饮食文化底蕴与潜在营养价值[1-2]。苞谷酸的自然发酵主要依靠原料自身携带及环境中的自发菌群,在25~30 ℃条件下形成以乳酸菌、酵母菌为主的优势菌群体,促进有机酸积累与风味物质生成[3-4]。然而这种依赖自发菌群的传统工艺往往导致发酵周期长、产品风味和品质批次间波动大,不利于产品标准化生产和品质稳定控制[5]。因此,深入解析苞谷酸的核心发酵微生物并阐明关键工艺因子调控机制是推动苞谷酸产业化发展的关键。
在苞谷酸的传统制作工艺中,辣椒不仅是色泽与风味的主要来源,还具有一定的诱导发酵与生态调控作用[6-7]。辣椒中富含的辣椒素、多酚及天然多糖等成分,具备抗氧化与菌群调控潜力,可影响微生物群落结构与风味代谢网络[8-9]。研究表明辣椒中的辣椒素类物质对部分微生物具有选择性抑制作用,能够抑制肠杆菌科等杂菌生长,从而调控发酵体系,促进耐受性更强的乳酸菌增殖[7,10]。凌洁玉等[9]发现辣椒多糖在发酵中发生结构变化并具有清除自由基活性,提示其可能参与发酵体系稳定构建;黄璐晗等[8]通过感官评价与优化实验证实,适量辣椒有助于提升鲊辣椒酸度与风味得分。Cai等[11]指出,辅料组合显著影响鲊辣椒发酵菌群稳定性与风味形成,辣椒添加在调控乳酸菌主导的发酵方向中发挥关键作用。目前关于辣椒与玉米粉质量配比已有部分研究提供可借鉴的工艺依据。白娟等[2]通过响应面优化鲊辣椒工艺发现,辣椒与米粉质量比为1∶1时,感官评分最高;王微等[1]也指出,1∶1比例为传统制法中的常用配比。
随着高通量测序技术的发展,解析发酵食品核心菌群演替已成为揭示品质形成机制的关键[11-13]。值得注意的是,在玉米-辣椒自然发酵体系中,乳酸菌(lactic acid bacteria, LAB)通常占据绝对优势地位,已有研究表明其相对丰度可达70%~80%,是驱动发酵酸化与品质形成的核心动力[11,14]。尽管主辅料配比被认为是影响微生态演替的关键因子[15-18],但鲜红辣椒添加比例如何通过改变环境选择压力调控核心细菌群落的演替路径及稳态建立,尚缺乏系统解析。为此,本研究以湘西地区传统发酵苞谷酸为研究对象,设置辣椒与玉米粉质量比为0.8∶1、1∶1 和 1.2∶1 的3个处理组,聚焦于细菌群落结构的动态演替,旨在揭示辣椒添加比例调控下的优势菌属动态,为苞谷酸的微生态调控与品质优化提供理论依据。
1 材料与方法
1.1 材料与试剂
新鲜红线椒(湘西本地品种)、黄玉米粉,湘西土家族苗族自治州市场。参照姚红等[6]的方法预处理:红线椒清洗去蒂后粉碎(粒径≤2 mm),玉米粉过30目筛。按鲜红辣椒与玉米粉质量比0.8∶1、1∶1和1.2∶1设置3个处理组(1∶1为传统参考比例[1-2])。混合原料添加质量分数为1%的食盐,装入水封坛中压实,于25~30 ℃自然发酵60 d,每组设3个重复。分别于发酵0、15、30、45、60 d无菌采集上、中、下层混合样,液氮速冻后于-80 ℃保存。样品编号记为“BGS-发酵时间-处理组代码”,其中BGS表示苞谷酸样品,发酵时间采用数字表示(0、15、30、45、60),处理组代码d1、d2、d3分别表示鲜红辣椒与玉米粉质量比为0.8∶1、1∶1和1.2∶1的处理组。
乳酸标准品(纯度≥98%),美国 Sigma-Aldrich 公司;AMPure XT磁珠,美国 Beckman Coulter 公司;Qubit® dsDNA HS检测试剂盒,美国 Invitrogen 公司;Agilent DNA 1000试剂盒,美国 Agilent 公司;NovaSeqTM 6000 SP试剂盒,美国 Illumina 公司;水系微孔滤膜(0.22 μm),海宁市桃园膜分离设备厂;NaOH、DNS、十六烷基三甲基溴化铵(cetyltrimethylammonium bromide,CTAB)等常规化学与生化试剂,均为国产分析纯,国药集团化学试剂有限公司。
1.2 仪器与设备
1260 HPLC、2100生物分析仪,美国 Agilent Technologies 公司;NovaSeq 6000 高通量测序仪,美国 Illumina 公司;TU-1901 紫外可见分光光度计,北京普析通用仪器有限责任公司;T18 digital ULTRA-TURRAX® 高速组织捣碎机,德国 IKA 公司;3-18K 高速冷冻离心机,德国 Sigma 公司;PHS-3C pH 计,上海仪电科学仪器股份有限公司;另配备电子天平、高压蒸汽灭菌锅、生化培养箱等常规实验室设备。
1.3 实验方法
1.3.1 理化指标测定
1.3.1.1 pH值与总酸含量测定
参照GB 12456—2021《食品安全国家标准 食品中总酸的测定(含第1号修改单)》并结合文献[19]方法。准确称取5.0 g样品,加入45 mL去离子水,8 000 r/min 均质2 min后过滤。滤液直接用于pH值测定;另吸取25 mL滤液,以酚酞为指示剂,用0.05 mol/L NaOH标准溶液滴定至终点,计算总酸含量(以乳酸计)。
1.3.1.2 还原糖含量测定
参照朱作华等[19]的方法,采用3,5-二硝基水杨酸比色法进行测定。吸取1.0 mL前述滤液(见1.3.1.1节),加入1.5 mL DNS试剂,沸水浴加热5 min,冷却后定容至25 mL。于540 nm 波长处测定吸光度值,以葡萄糖为标准品定量。
1.3.1.3 乳酸含量测定
参照肖何等[20]的方法,采用HPLC测定。取前述滤液(见1.3.1.1节)经0.22 μm水系滤膜过滤后进样。色谱条件:Agilent ZORBAX SB-C18 色谱柱(4.6 mm×250 mm, 5 μm);流动相为 0.01 mol/L磷酸二氢钾溶液(使用磷酸调节pH值至2.7);流速0.8 mL/min;柱温30 ℃;检测波长 210 nm;进样量 10 μL。采用外标法定量。
1.3.2 微生物多样性分析
基于前述细菌在苞谷酸发酵体系中的核心驱动地位[11,14],本研究采用16S rRNA V3-V4区扩增子测序技术解析细菌群落演替规律。采集各组样品(见1.1节)后,采用改良CTAB法提取总DNA,经10 g/L琼脂糖凝胶电泳、紫外分光光度计及Qubit® dsDNA HS检测试剂盒完成完整性、纯度与浓度检测[21],质检合格后送至杭州联川生物技术有限公司测序[22](全程设置无菌水为阴性对照)。以通用引物 338F/806R扩增 V3-V4 区,构建文库并基于Illumina NovaSeq 6000平台进行双端测序(2×250 bp)[23]。测序数据参照周罗娜等[17]的流程处理:经Cutadapt、Flash及Vsearch完成质控、拼接与去噪;采用DADA2获得扩增子序列变体(amplicon sequence variants,ASV)特征表,并基于SILVA 138数据库注释。计算Chao1、Shannon等α多样性指数;基于Jaccard距离进行NMDS及PERMANOVA分析(adonis2, 999次置换)以评估β多样性差异[24]。
1.3.3 感官特征观察
感官特征观察参考Liao等[18]的描述性分析方法并略作修改。组织经过感官评价培训的12名食品科学专业人员组成评价小组。样品(约50 g)置于洁净的白盘中,以3位随机数字编号进行盲样编码,在室温(25±2)℃及自然光下呈现。评价员首先独立观察并品尝样品,记录色泽、香气及滋味特征描述词;随后通过小组讨论归纳高频描述词,直至达成共识,最终汇总形成感官特征描述表。
1.3.4 数据处理与分析
所有理化指标结果以3个独立发酵坛样品的“平均值±标准差”表示,每个坛样品进行3次平行测定。数据分析与图表绘制采用Origin 2025b软件及OmicStudio在线平台(https://www.omicstudio.cn)。统计分析使用SPSS 26.0软件进行单因素方差分析(One-way ANOVA),并采用Duncan多重比较检验同一时间点下不同处理组间的差异显著性,以P<0.05为显著差异水平。
2 结果与分析
2.1 发酵过程中理化指标的变化
如图1-a所示,体系pH值由初始的4.6左右迅速下降,在30~45 d期间稳定在4.0左右的酸性平台期。与之对应,总酸含量(以乳酸计)则从初期的3.75~4.75 g/kg快速攀升至峰值(9.60~10.60 g/kg)。这一过程伴随着作为主要碳源的还原糖被持续消耗,其含量由初始的1.2~1.3 g/kg降至0.5 g/kg以下(图1-b)。还原糖的快速消耗与乳酸的同步积累,是乳酸发酵的典型特征,表明发酵体系在功能微生物的代谢作用下迅速酸化,形成了不利于杂菌生长的稳定环境,这与前人[19,25]在类似发酵蔬菜中的研究结果高度一致。
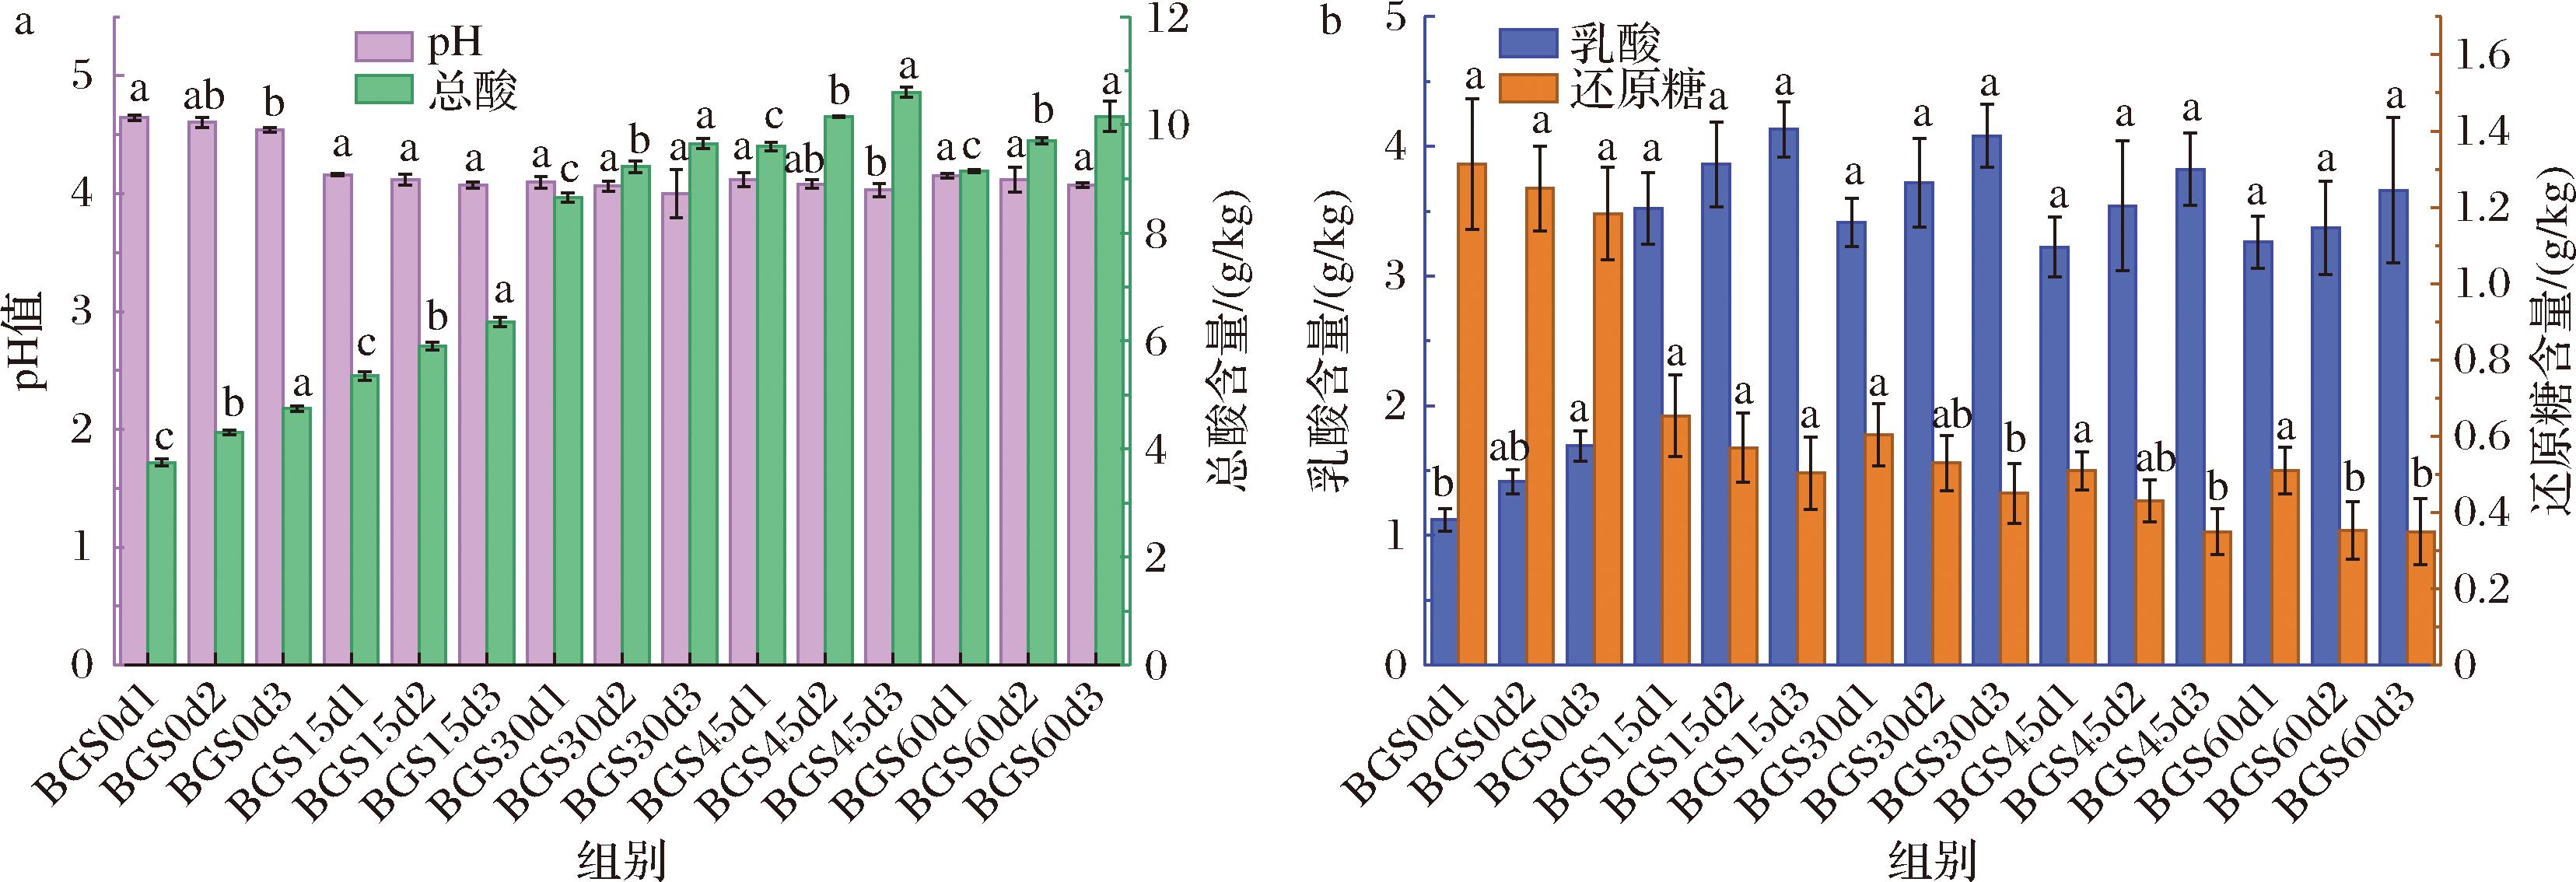
a-pH值与总酸含量;b-乳酸与还原糖含量
图1 苞谷酸发酵过程中理化指标的变化
Fig.1 Changes in physicochemical properties during Baogu Suan fermentation
注:图中标注的小写字母分别表示 pH、总酸、乳酸和还原糖在同一发酵时间点不同处理组间的显著性差异(P<0.05),各指标的显著性分析分别独立进行,相同字母表示差异不显著。
统计分析表明,在所有检测时间点,总酸含量在3个处理组间均存在显著差异(P<0.05),并遵循高辣椒组(d3)>中辣椒组(d2)>低辣椒组(d1)的规律,表明辣椒添加比例与体系的酸化速率呈正相关。其中,高辣椒组表现出更快的糖耗速率与总酸积累,这一现象可能与辣椒中的活性物质所施加的“环境选择压力”有关[7,10]。尽管高辣椒组在后期消耗了更多的糖,但各组间的乳酸含量无显著差异(P>0.05),这揭示了发酵代谢网络的复杂性,即额外消耗的糖分可能被部分分流用于合成乙醇、乙酸或其他挥发性风味物质[15,26]。值得注意的是,本研究中各组pH值在发酵后期稳定在约4.0(图1),与朱作华等[19]报道的湘西苞谷酸在成熟期pH≈3.8的结果相近(差异可能源于原料配比或发酵温度等工艺因素)。pH≤ 4.0通常被视为发酵蔬菜体系抑制多数腐败菌和致病菌生长的安全阈值。在总酸方面,本研究末期样品的总酸含量为9.60~10.60 g/kg,与文献中鲊辣椒类产品常见的总酸范围相符,且符合王微等[1]提出的“优质鲊辣椒总酸≤2.0%”的质量评价标准。此外,高辣椒组表现出更快的酸化速率与更高的产酸量,可能是辣椒所含的辣椒素等活性物质对初期非耐酸微生物的选择性抑制作用,促使耐酸乳酸菌快速富集并增强代谢活性[10]。
理化指标的动态变化清晰地反映了苞谷酸发酵的3个阶段,前期的快速酸化、中期的产酸高峰与相对稳定,以及后期的成熟平衡。鲜红辣椒的添加比例作为关键工艺参数,不仅影响发酵的启动速率和代谢效率,还可能通过调控酸化进程及相关风味形成过程,在一定程度上影响最终产品的色泽与风味特征。
2.2 有效数据统计
本研究对原始测序数据进行了双端序列拼接、过滤及嵌合体去除等系统质控[24]。结果显示,各样品测序深度充足,具备良好的群落覆盖能力,具体测序数据统计如电子版增强出版附表1所示(https://doi.org/10.13995/j.cnki.11-1802/ts.044792,下同)。经质控处理后,各样品的有效序列占比平均为(95.94±1.01)%,Q20和Q30碱基比例平均值分别为99.11%、96.96%,符合Illumina平台的测序质量标准。该质控水平与Chen等[27]在辣椒类发酵研究中的结果一致,表明文库构建效率较高。尽管个别发酵中后期样品(如BGS30d1_2)的有效序列占比略有下降,可能与微生物代谢产生的胞外多糖导致的基质复杂化干扰DNA提取有关[28],但整体测序数据质量稳定可靠,可满足后续微生物群落结构及功能分析的需求[27,29]。
表1 不同鲜红辣椒添加比例下苞谷酸发酵终点(60 d)的感官特征描述
Table 1 Sensory characteristics description of Baogu Suan at the end of fermentation (60 d) with different fresh red chili ratios
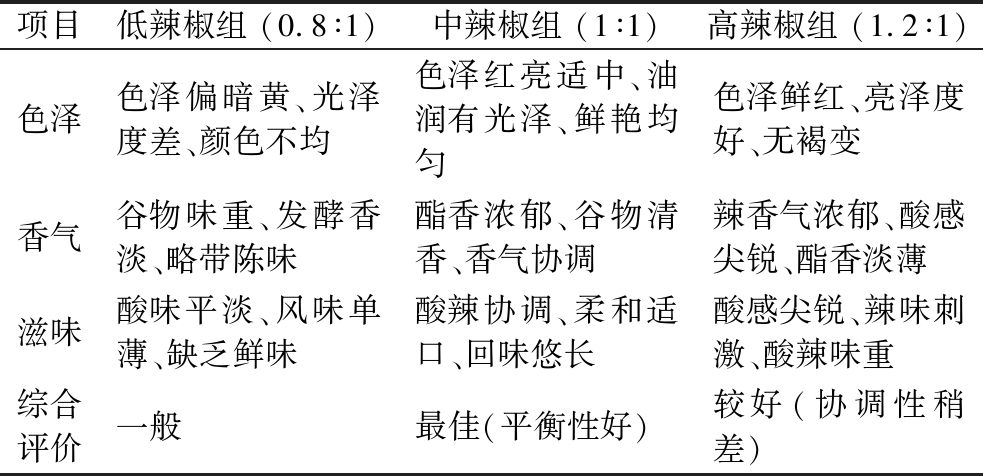
项目低辣椒组 (0.8∶1)中辣椒组 (1∶1)高辣椒组 (1.2∶1)色泽色泽偏暗黄、光泽度差、颜色不均色泽红亮适中、油润有光泽、鲜艳均匀色泽鲜红、亮泽度好、无褐变香气谷物味重、发酵香淡、略带陈味酯香浓郁、谷物清香、香气协调辣香气浓郁、酸感尖锐、酯香淡薄滋味酸味平淡、风味单薄、缺乏鲜味酸辣协调、柔和适口、回味悠长酸感尖锐、辣味刺激、酸辣味重综合评价一般最佳(平衡性好)较好(协调性稍差)
2.3 样品的ASV统计及分析
本研究采用上维图(UpSet Plot)对每个辣椒比例组在5个发酵时间点(0、15、30、45、60 d)的扩增子序列变体(amplicon sequence variants, ASVs)交集情况进行可视化分析,结果如图2所示。
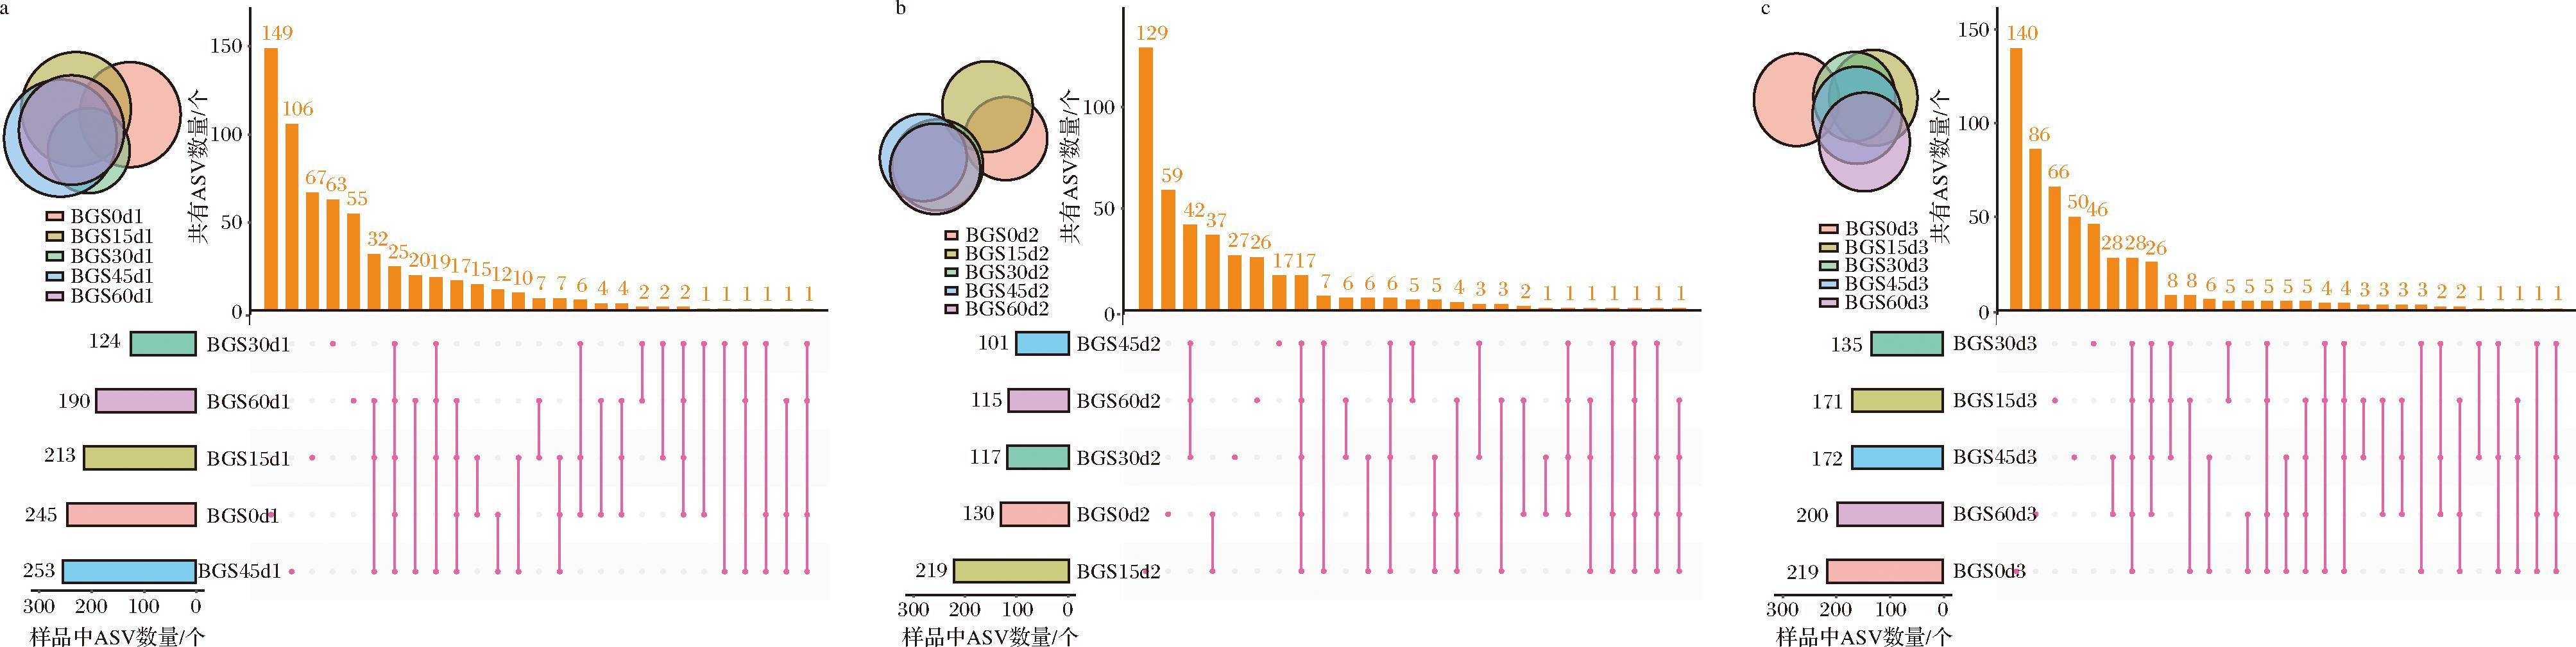
a-低辣椒组(0.8∶1);b-中辣椒组(1∶1);c-高辣椒组(1.2∶1)
图2 不同辣椒添加比例组在发酵过程中的 ASV UpSet 图分析
Fig.2 UpSet plot analysis of ASVs during fermentation in different chili-corn ratio groups
低辣椒组(图2-a)表现出较高的阶段性变化特征。尽管该组具有相对较大的核心ASV数量(25个),但在发酵初期(0 d)和中期(45 d)均出现大量特有ASV(分别为149、106个)。尤其45 d时再次出现特有ASV数量的增加,提示在较低辣椒比例下,发酵体系可能更易受到外界微生物输入或体系内部扰动的影响,菌群结构波动较大,这与Chen等[27]观察到的低盐/低胁迫环境下菌群演替不稳定的现象类似。中辣椒组(图2-b)表现为“先分化后收敛”的趋势。该组核心ASV数量较少(17个),15 d时的特有 ASV 数量达到峰值(129个),随后快速减少(30~60 d均<30个)。这表明中辣椒组中,发酵中期(15 d)可能处于菌群重组与筛选的关键阶段,之后随着优势菌群的确立逐步趋于稳定[29]。高辣椒组(图2-c)呈现出明显的早期收敛特征。该组具有最多的核心ASV数量(28个),且特有ASV的大量出现并集中在 0 d(140个),随后在整个发酵过程中始终保持个位数水平。这可能与较高质量比辣椒带来的更强环境选择压力(如辣椒素、酸度快速变化)有关[10],使得菌群在发酵早期便完成了快速筛选,从而更稳定地维持以核心菌群为主导的微生态系统。
综上,不同辣椒比例下的菌群演替路径表现出明显差异。低辣椒组表现为“阶段性波动”;中辣椒组显示“先分化后收敛”;高辣椒组则呈现“快速收敛并保持稳定”的特征。结果表明,辣椒比例可能通过改变发酵早期的环境压力,影响菌群的筛选速度与演替模式。
2.4 样品细菌群落α多样性分析
α多样性是评价微生态群落丰富度与均匀度的核心指标[21]。本研究基于高通量测序计算了Shannon、Simpson和Chao1指数(具体数据见附表2)。
Shannon与 Simpson指数的变化趋势高度一致:发酵初期3组样品均维持较高的多样性,随后随发酵进程显著下降,并于30 d后趋于稳定,标志着优势菌群的演替确立[26,30]。其中,高辣椒组在发酵后期的下降幅度最为剧烈,表明其群落均匀度快速降低。这与耐受性乳酸菌在较高辣椒比例的环境选择压力下迅速富集、形成单优势结构密切相关,该现象在同类辣椒发酵体系中也有报道[31]。Chao1指数进一步揭示了物种丰富度的动态变化。发酵中后期该指数显著下降,尤其是中、高辣椒组的剧烈收敛,推测是辣椒素等活性物质对早期非优势菌群产生了选择性抑制作用,从而加速了功能菌群的富集过程[10]。
此外,稀释曲线(见附图1)在测序量达标后趋于平坦,表明测序深度已充分覆盖主要菌群[32]。综合来看,高辣椒组呈现出最低的均匀度与最快的演替速率,证明辣椒添加比例通过调节选择压力对菌群结构实施了定向筛选。
2.5 样品细菌群落β多样性分析
为深入探究鲜红辣椒添加比例与发酵时间对苞谷酸样品细菌群落结构差异性的影响,本文基于16S rRNA 扩增子高通量测序数据,采用Jaccard距离构建样品间的群落相异性矩阵,结合非度量多维尺度(non-metric multidimensional scaling, NMDS)分析对细菌群落β多样性进行可视化,并通过基于Jaccard 距离的PERMANOVA(adonis2, 999 次置换)检验不同组间群落差异的显著性,结果如图3所示。
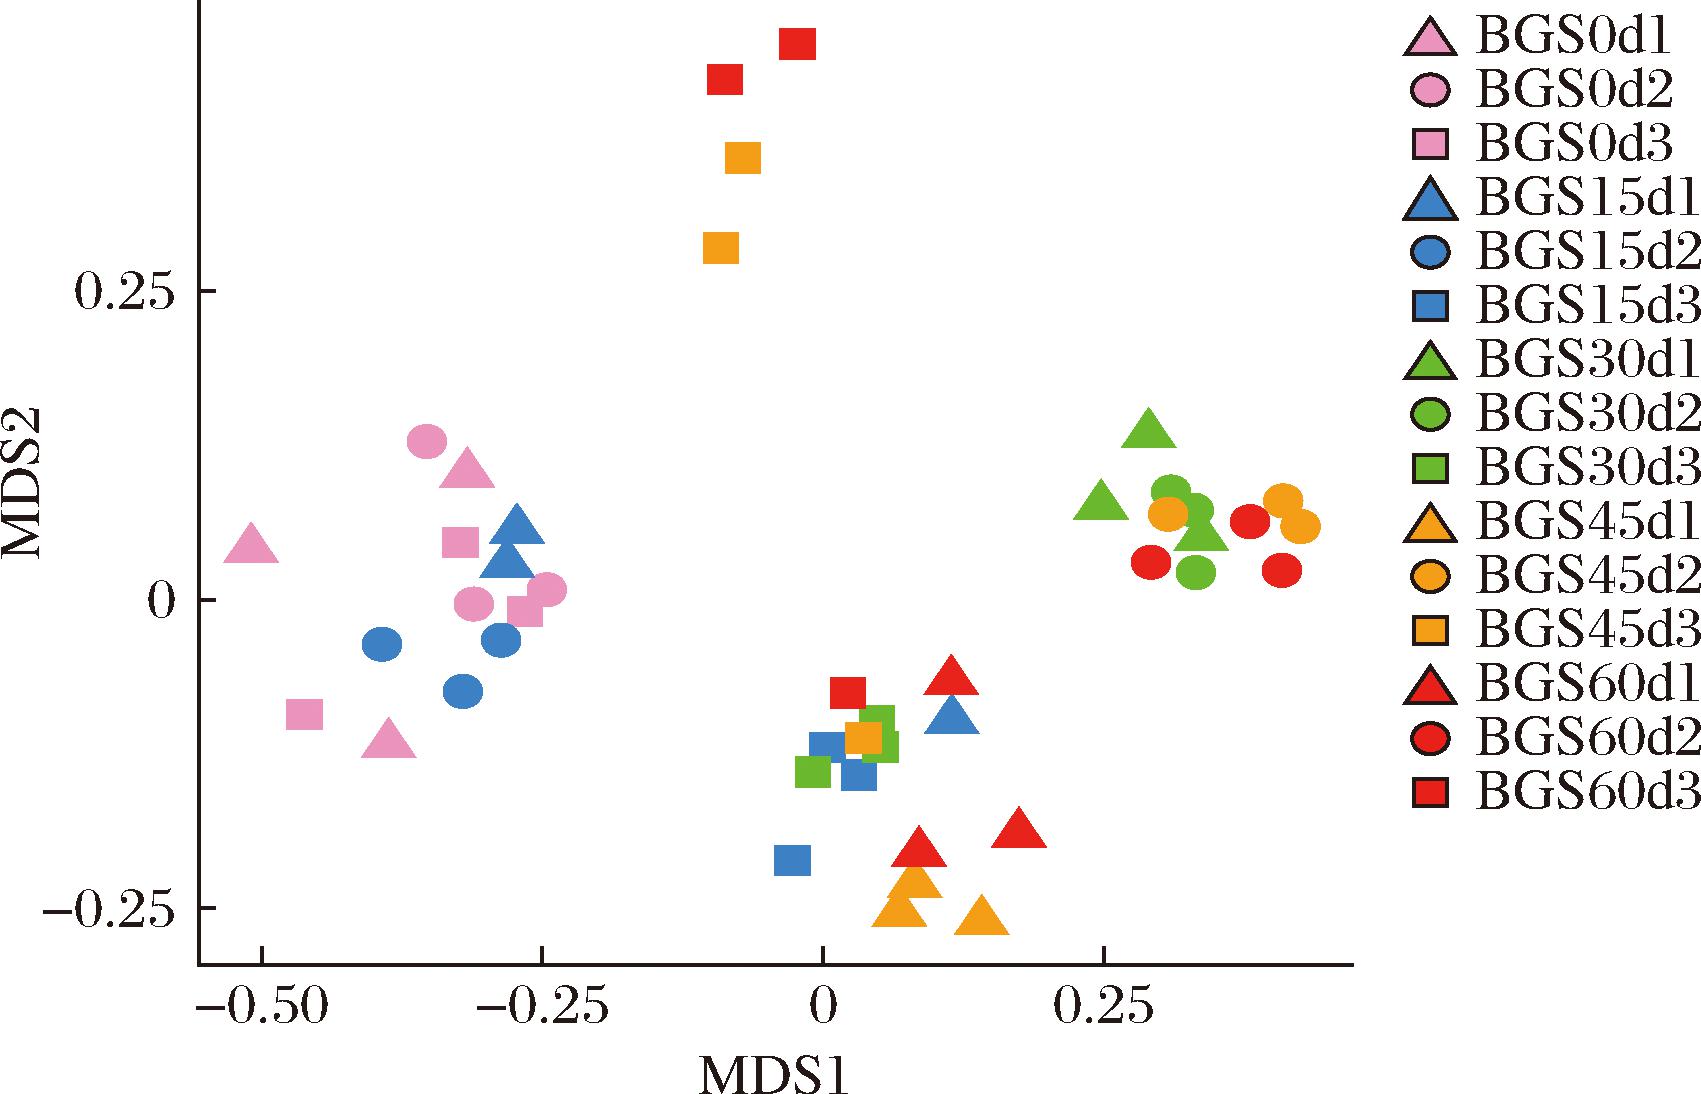
图3 样品细菌群落NMDS分析(stress=0.10)
Fig.3 NMDS analysis of bacterial communities in samples (stress=0.10)
NMDS分析结果显示,不同发酵阶段样品在二维坐标系中呈现出明显的时序分布特征,揭示了群落结构的动态演替过程。发酵初期样品(0 d和15 d各处理组)分布相对分散,集中于坐标图左上区域,说明此阶段群落结构尚处于构建初期,异质性较高。随着发酵进程推进,发酵中后期样品(30~60 d各处理组)在坐标图右下区域形成相对紧密的聚类簇,表明细菌群落结构逐步趋于收敛和稳定,演替过程进入成熟阶段[26]。
从辣椒添加比例维度观察,3组样品在 NMDS 空间中呈现出差异化的聚类趋势。高辣椒添加组(如 BGS30d3、BGS45d3、BGS60d3)样品聚类更为紧密,组内相似性更高,提示高比例辣椒可能有助于优势菌群(如乳酸菌)的快速建立,从而加速群落重塑并促进系统向稳定状态演化。相较之下,低辣椒添加组(如 BGS30d1、BGS45d1、BGS60d1)样品分布较为分散,暗示其群落结构可能受环境因素波动影响较大,整合进程相对较慢。这种群落结构的演替差异不仅可通过β多样性分析直观呈现,也可能与发酵环境 pH值下降、底物耗竭及乳酸菌竞争性定殖等因素驱动的生态选择有关[10]。
PERMANOVA 结果为上述观察提供了统计学支持。分析表明,实验分组(综合发酵时间与辣椒比例)对细菌群落结构具有显著影响(R2=0.20,P=0.001),能够解释群落结构中约20%的变异。这表明鲜红辣椒添加比例是影响苞谷酸发酵微生态的重要因子之一。高比例辣椒可能通过加速优势菌群筛选进程,提升系统稳定性,这为调味型发酵食品微生态的定向调控提供了理论依据。
2.6 门水平上细菌群落物种注释
为揭示鲜红辣椒添加比例对苞谷酸自然发酵过程中细菌群落结构的调控效应,本文基于高通量测序获得的有效序列,利用SILVA数据库对门(phylum)水平进行注释和可视化分析,结果如图4所示。
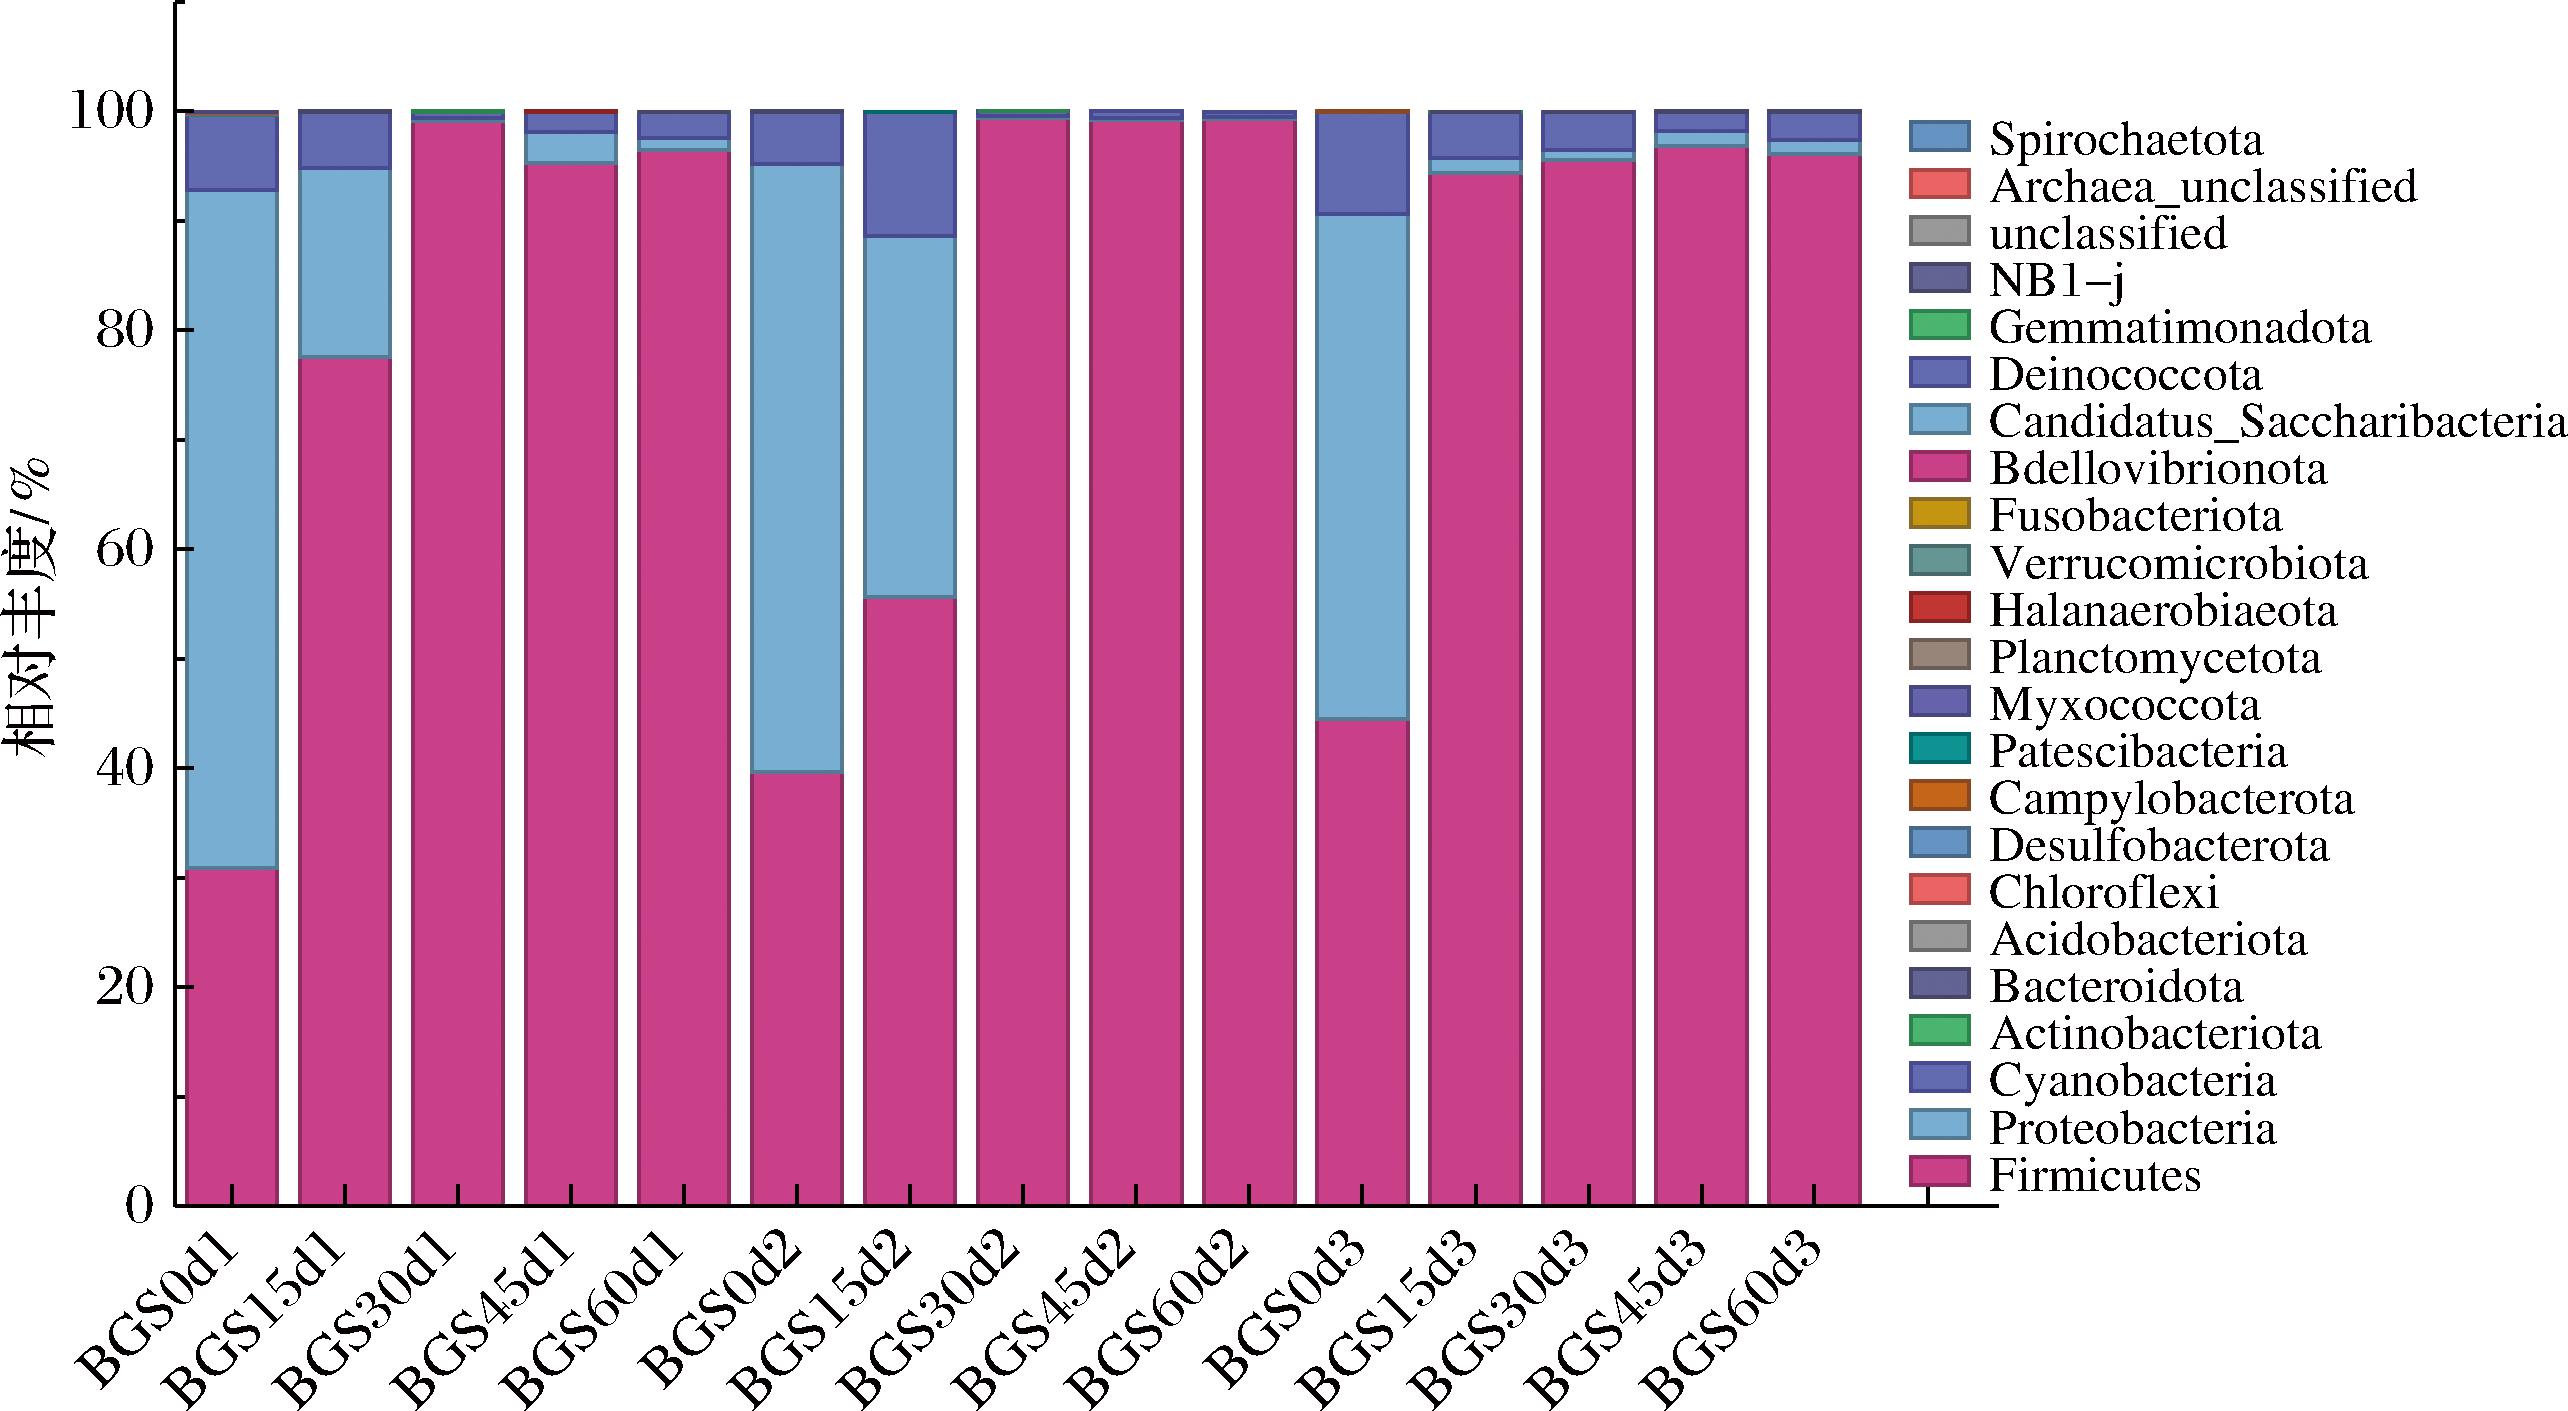
图4 样品细菌门水平上的群落结构组成
Fig.4 Bacterial community composition at the phylum level in samples
在发酵初期(0 d),所有样品的菌群结构均呈现出多样化的特点,主要由厚壁菌门(Firmicutes)和变形菌门(Proteobacteria)共同主导,此外还检测到少量蓝藻门(Cyanobacteria)。这种起始阶段由多门类共存的模式在类似发酵食品研究中较为常见,通常与原料及环境的初始微生物有关[26,32]。随着发酵的进行,群落结构发生了迅速的定向演替。从15 d起,Firmicutes的相对丰度在所有组中均急剧上升,而Proteobacteria的相对丰度则相应地显著下降。测序结果显示至发酵末期(60 d),Firmicutes在所有处理组中的相对丰度均超过98%,这一结果表明细菌在苞谷酸发酵体系中占据了显著优势。这一发现与Cai等[11]及杨晨等[14]在鲊辣椒中的研究结论高度一致。鉴于乳酸菌对产酸含量、pH值降低等关键工艺性状的决定性作用以及本研究中细菌的丰度优势,本研究优先聚焦解析细菌群落的演替机制。尽管部分研究指出酵母等真菌可能参与风味形成过程[6,33],但不在本研究(基于16S rRNA测序)的讨论范围内。研究发现,鲜红辣椒的添加比例在一定程度上影响了这一演替过程的速率。在发酵15 d时,低辣椒组(BGS15d1)中仍保留了较高比例的Proteobacteria,而在中、高辣椒组中,Firmicutes的优势地位已基本建立。这可能与辣椒富含的辣椒素等活性物质的选择性抑制作用有关[34],即辣椒素可能抑制了部分Proteobacteria(如肠杆菌科)的生长,从而为Firmicutes中的优势乳酸菌类群提供了竞争优势[7,10]。这种微生态结构的快速演替与中、高辣椒组更快的酸化进程相吻合,提示高比例辣椒可能有助于缩短优势菌群建立所需的时间[26,35]。
2.7 属水平上细菌群落物种注释
为进一步解析鲜红辣椒添加比例对菌群演替路径的影响,基于属水平对所有样品的相对丰度进行分析,结果如图5所示。在发酵初期(0 d),不同辣椒比例组的初始菌群结构呈现显著差异。低辣椒组(BGS0d1)以泛菌属(Pantoea)为主导;中辣椒组(BGS0d2)菌群结构最为多样,主要由魏斯氏菌属(Weissella)、乳球菌属(Lactococcus)等构成;而高辣椒组(BGS0d3)在发酵起始时就已表现出明显的选择性趋势,超过80%的菌群为伴生乳杆菌属(Companilactobacillus)。Pantoea等常见于植物原料表面,通常在发酵产酸后被快速淘汰[7]。随着发酵的进行,所有组的菌群结构都发生了明显的演替。在低、中辣椒组中,初期优势菌群(Pantoea以及部分早期乳酸菌成员Weissella)逐渐被Companilactobacillus、利维乳杆菌属(Levilactobacillus)和乳杆菌属(Lactobacillus)等优势乳酸菌取代。这些乳酸菌属的快速增殖趋势(图5),在时序上与体系中还原糖的急剧消耗和乳酸的大量积累(图1)高度吻合,提示它们可能是驱动苞谷酸糖耗产酸及酸性风味形成的主要功能菌群[26]。
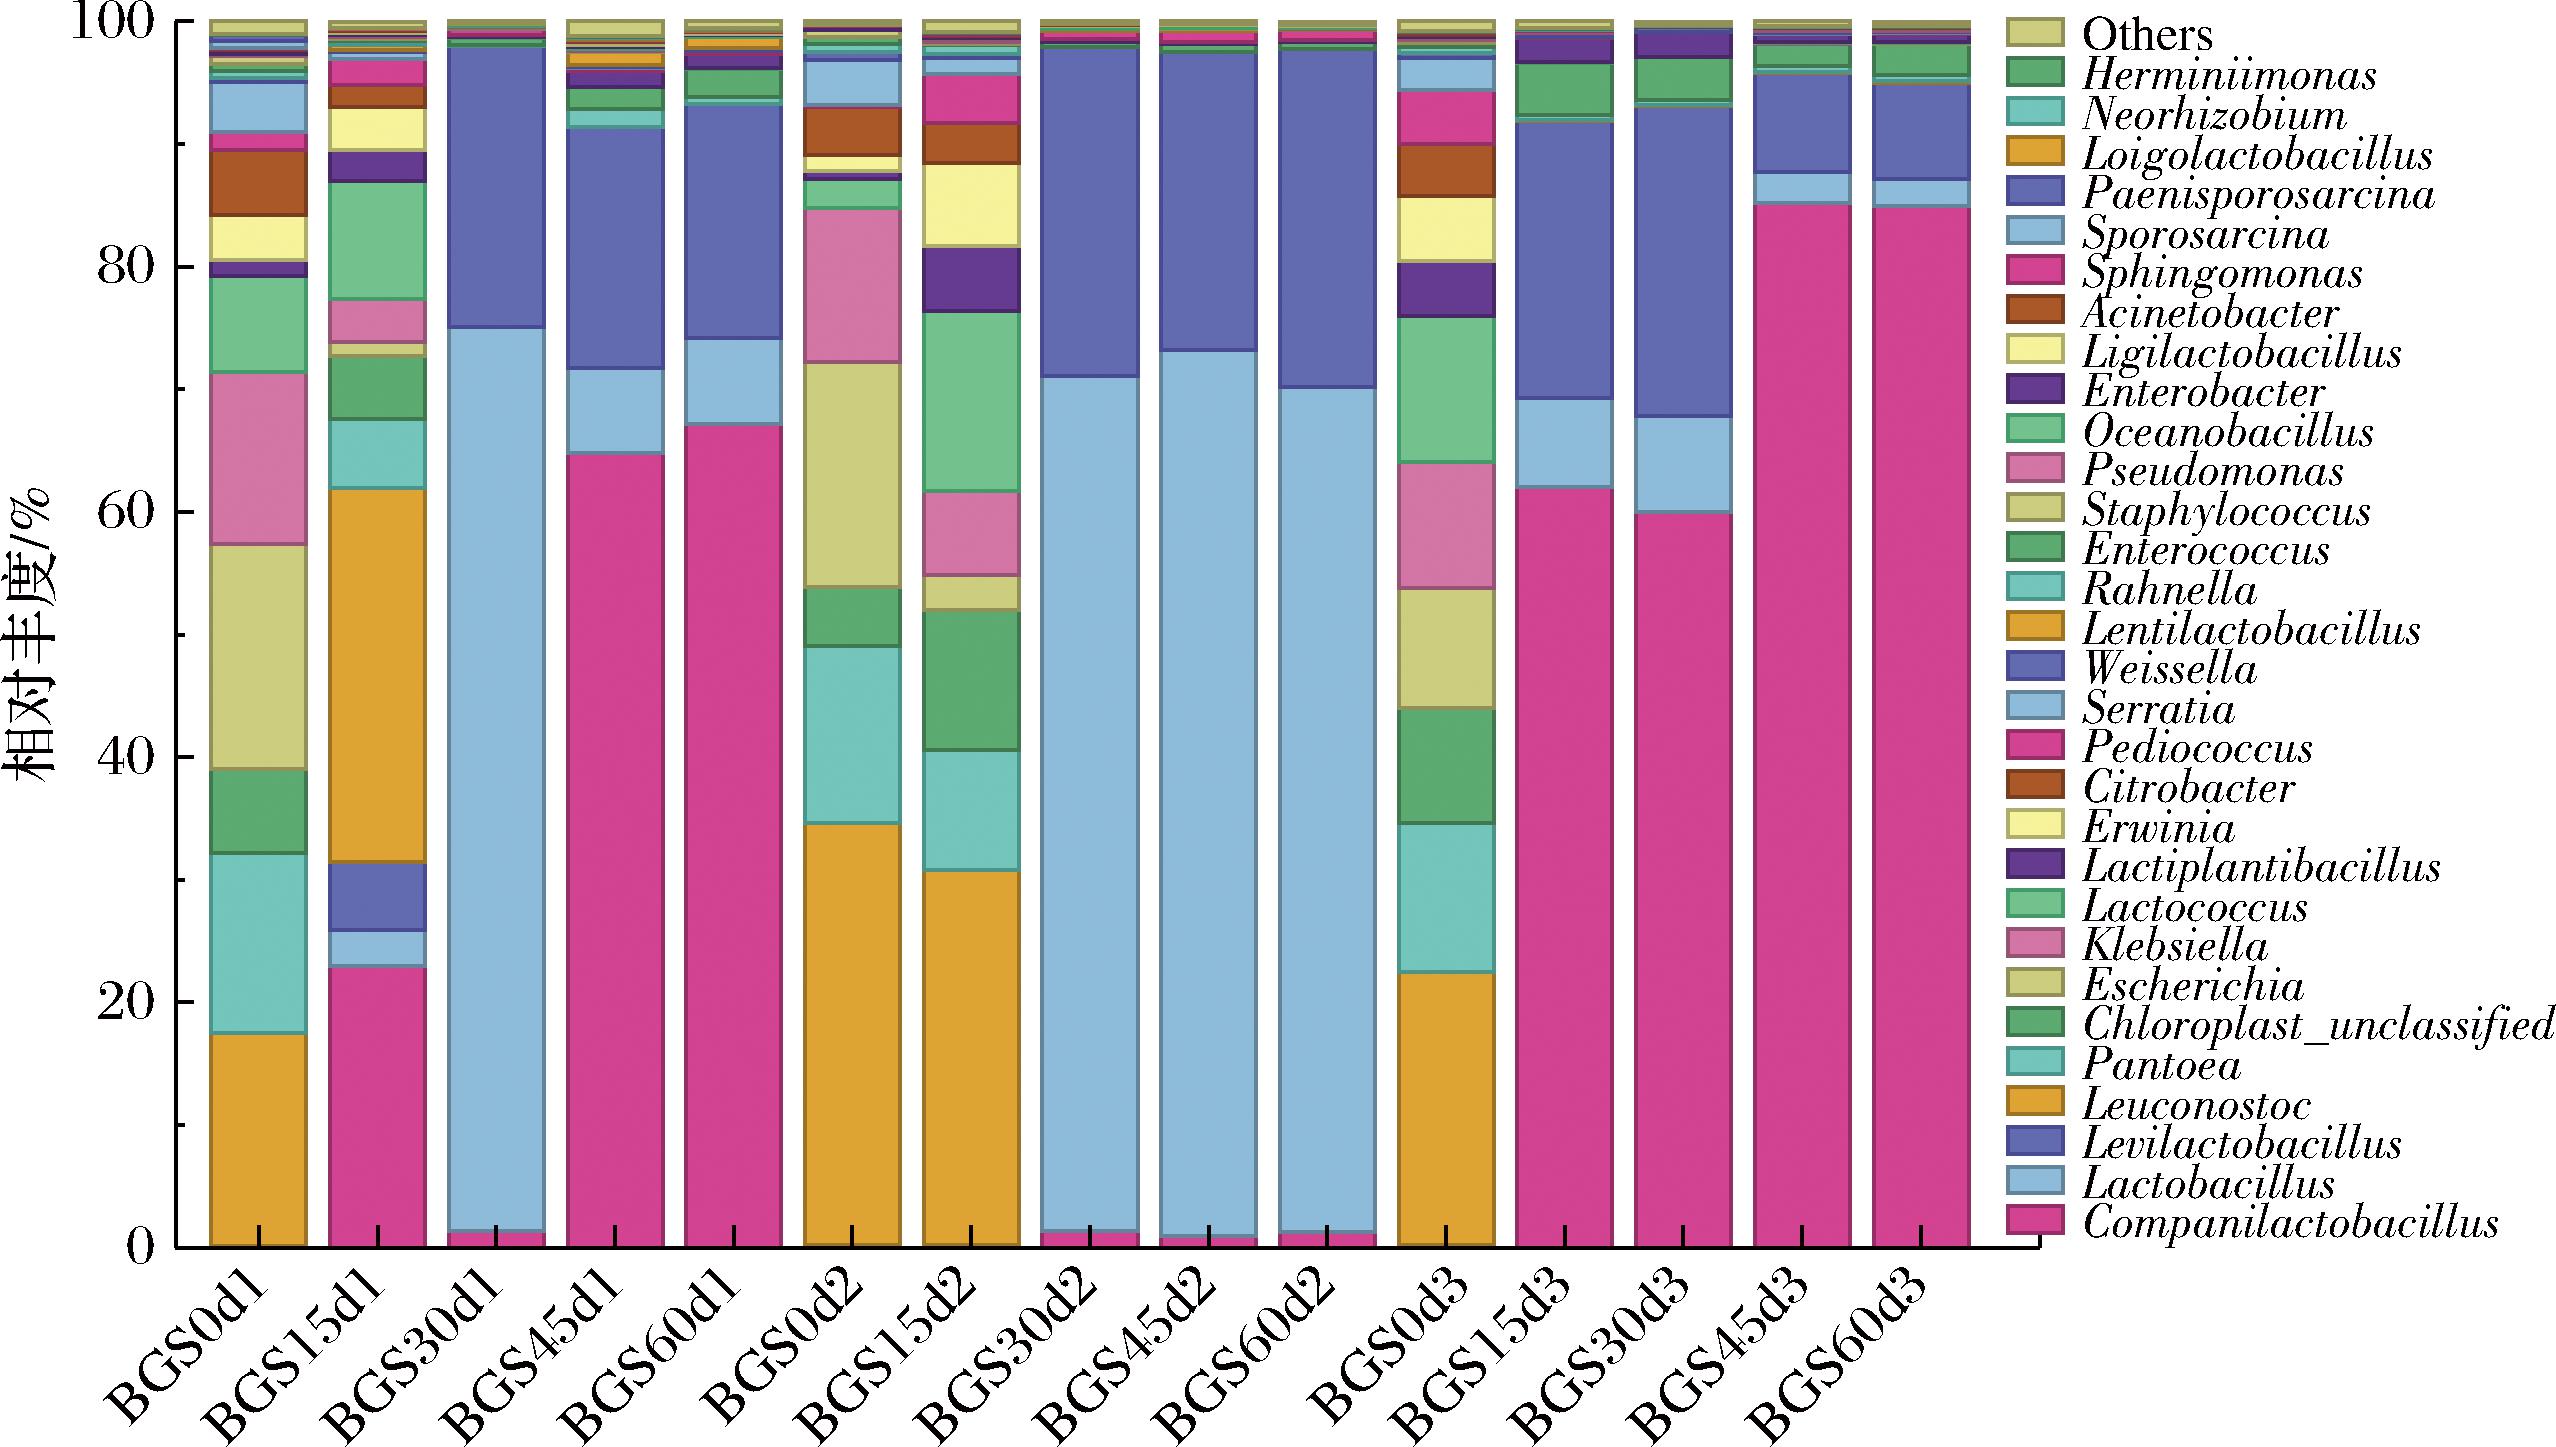
图5 样品细菌属水平上的群落结构组成
Fig.5 Bacterial community composition at the genus level in samples
辣椒添加比例在一定程度上影响了菌群的演替路径和速率。高辣椒组(d3)的演替路径最为直接,核心菌属Companilactobacillus从发酵初期即占据主导地位,并在15 d就达到近乎饱和的相对丰度。相比之下,中、低辣椒组则经历了一个更为复杂的由多菌共存向乳酸菌富集的演替过程。这种演替速率的差异与理化指标的变化趋势相一致:高辣椒组因其初始菌群即以Companilactobacillus等优势乳酸菌类群为主,故其在本研究条件下表现出最快的酸化速率和最高的总酸积累量(图1)。Companilactobacillus已被证实为玉米基鲊辣椒中的核心优势菌属[36-37],其对辣椒中活性成分的高度耐受性,可能是其在高比例辣椒环境中建立竞争优势的关键因素之一[10]。属水平的分析揭示了辣椒添加比例是影响苞谷酸发酵演替路径和效率的关键变量,高比例辣椒(d3)组可能通过强烈的初始环境选择,直接富集了与酸化过程密切相关的优势菌属(Companilactobacillus),从而简化了复杂的早期演替阶段,促使发酵进程更快地进入稳定和成熟期。
2.8 理化指标与核心菌属的相关性分析
本研究对主要理化指标(pH值、总酸含量、乳酸含量、还原糖含量)与相对丰度排名前30的核心菌属进行了Spearman相关性分析,结果见图6。

图6 理化指标与核心菌属的Spearman相关性分析
Fig.6 Spearman correlation analysis between physicochemical indicators and core bacterial genera
如图6所示,菌属丰度与理化指标之间呈现出多种显著相关关系。作为发酵中后期的主要乳酸菌类群,Companilactobacillus、Lactobacillus和Levilactobacillus相对丰度与总酸及乳酸含量均呈显著正相关(P<0.05),与 pH 值和还原糖含量呈显著负相关。这些结果与其在产酸和体系酸化中的潜在关键作用一致[26]。相反,发酵初期的部分优势菌属[如Pantoea、克雷伯氏菌属(Klebsiella)]与 pH 值呈正相关,与酸度指标呈负相关,其丰度下降与发酵体系进入酸化和成熟阶段相吻合。该相关性模式与已有发酵辣椒制品的相关研究报道一致[11,15]。进一步探究核心菌属间的相互作用关系发现,Companilactobacillus与Pantoea之间呈显著负相关,这表明随着乳酸菌占据优势,初期菌属可能因生态位变化而逐渐被淘汰[35]。在几类主要乳酸菌属之间,如Companilactobacillu和Lactobacillus,其相关性较弱或呈正相关,可能反映了其在发酵生态位中的潜在共存或协同趋势。相关性分析揭示了部分乳酸菌属(特别是Companilactobacillus)与酸度形成之间的显著统计关联,并显示菌群内部可能存在竞争与协同关系。这些结果为理解苞谷酸发酵过程中菌群互作机制以及通过调控菌群实现品质定向控制提供了重要参考。
2.9 成品感官特征分析
为直观评价不同辣椒添加比例对最终产品品质的影响,各组样品在发酵终点(60 d)的感官特征描述结果如表1所示。
描述性感官观察结果显示,不同鲜红辣椒添加比例对成品感官品质影响显著。高辣椒组(1.2∶1)虽在色泽上优势明显,但过快的酸化导致酸感尖锐,协调性反而下降;低辣椒组(0.8∶1)则因色泽与风味平淡导致接受度欠佳。相比之下,中辣椒组(1∶1)色泽红亮、酯香浓郁、酸辣协调、柔和适口,整体风味最为协调,这一结果验证了白娟等[2]关于1∶1为最佳工艺配比的结论。
上述感官差异与前述理化指标(图1)及优势菌群演替规律(图5)表现出内在联系:高辣椒组的快速酸化与Companilactobacillus的绝对优势带来了鲜亮的色泽,但过快的代谢速率可能导致风味物质积累单一或酸度过高[26];而中辣椒组适中的菌群演替速率,更有利于复杂风味物质的形成与平衡[11,18]。需指出的是,本研究的感官结果为定性描述,旨在补充风味特征的宏观信息。挥发性风味物质的具体来源与贡献尚需结合GC-MS等代谢组学技术在后续研究中进一步解析。
3 结论
本研究结果表明,鲜红辣椒添加比例可能是影响苞谷酸发酵过程中细菌群落演替路径与系统微生态特征的重要因子。发酵过程呈现出典型的微生态与理化变化规律:体系快速酸化,菌群由初期的多菌共存逐渐演替为以Firmicutes在相对丰度上占主导地位(>98%)、并由Companilactobacillus等核心乳酸菌群为代表的优势微生态。本研究发现辣椒添加比例与菌群达到稳定状态的模式和速率密切相关。高辣椒组(1.2∶1)呈现出类似“定向-富集”的演替特征,其核心功能菌属从发酵初期即占据优势,演替路径相对直接,群落结构波动较小;中辣椒组(1∶1)表现为“竞争-筛选”的过渡特征;而低辣椒组(0.8∶1)则呈现出“波动-共存”的趋势,群落结构变异度相对较高。这些演替模式与发酵动力学及最终感官品质密切相关。高辣椒组的‘定向-富集’模式解释了其最快的酸化速率,同时感官观察结果显示,虽然高辣椒组色泽鲜红油亮、辣香气突出,但中辣椒组(1∶1)在酸味、谷物原香及辣香之间呈现出更佳的平衡特征,整体感官接受度最高。综上,本研究认为,鲜红辣椒添加比例是调控品质的关键,提高比例可提升发酵效率,但 1∶1 的添加比例最有利于获得风味协调的优质产品。这一发现揭示了“发酵效率”与“感官品质”之间的平衡关系,为苞谷酸等传统植物性发酵食品的工艺优化、微生态调控和品质均一化控制提供了理论参考。
[1] 王微, 赵兴娥, 王颖, 等.鲊辣椒产品质量评价指标体系的建立[J].食品科学, 2013, 34(5):72-75.Wang W, Zhao X E, Wang Y, et al.Quality evaluation index system of preserved pepper[J].Food Science, 2013, 34(5):72-75.
[2] 白娟, 张瑶, 汪雪瑞, 等.响应面法优化鲊辣椒的发酵工艺[J].中国酿造, 2018, 37(10):106-110.Bai J, Zhang Y, Wang X R, et al.Optimization of fermentation process of preserved pepper by response surface methodology[J].China Brewing, 2018, 37(10):106-110.
[3] 张曼, 汤艳燕, 魏雪, 等.不同产地鲊辣椒风味成分比较分析[J].食品与发酵工业, 2021, 47(14):264-270.Zhang M, Tang Y Y, Wei X, et al.Comparison and analysis the flavor components of Zha-chili derived from different places in China[J].Food and Fermentation Industries, 2021, 47(14):264-270.
[4] 崔小利, 王薇, 阚建全.鲊辣椒纯种发酵的菌株优选[J].食品科学, 2014, 35(21):149-153.Cui X L, Wang W, Kan J Q.Screening strains for use in pure culture fermentation for the production of zhalajiao, a traditional Chinese fermented hot pepper product[J].Food Science, 2014, 35(21):149-153.
[5] 莫玉花. 包谷酸辣子自然发酵过程中微生物变化、优势菌筛选及应用研究[D].长沙:湖南农业大学, 2017.Mo Y H.Study on microbial changes, dominant strain screening and application during natural fermentation of Baogu Suanlazi[D].Changsha:Hunan Agricultural University, 2017.
[6] 姚红, 尹小庆, 颜宇鸽, 等.鲊辣椒生香酵母的分离筛选鉴定及其应用研究[J].食品与发酵工业, 2023, 49(17):145-152.Yao H, Yin X Q, Yan Y G, et al.Application of an aroma-producing yeast isolated from natural fermented Zha-chili[J].Food and Fermentation Industries, 2023, 49(17):145-152.
[7] Zhang Z D, Zhao H J, Deng Y M, et al.Bacterial diversity and its correlation with sensory quality of two types of Zha-chili from Shennongjia region, China[J].Food Research International, 2023, 168:112789.
[8] 黄璐晗, 尹小庆, 阚建全, 等.模糊数学感官评价结合响应面法优化鲊辣椒混菌发酵工艺[J].食品与发酵工业, 2024, 50(7):83-93.Huang L H, Yin X Q, Kan J Q, et al.Optimization of mixed strain fermentation process of Zha-chili by Fuzzy mathematics sensory evaluation combined with response surface methodology[J].Food and Fermentation Industries, 2024, 50(7):83-93.
[9] 凌洁玉, 周文轩, 庄志雄, 等.鲊辣椒多糖组分变化初步分析及抗氧化活性研究[J].东北农业科学, 2022, 47(3):145-149.Ling J Y, Zhou W X, Zhuang Z X, et al.Analysis of components and antioxidant activity of fermented cayenne polysaccharides[J].Journal of Northeast Agricultural Sciences, 2022, 47(3):145-149.
[10] Chung Y B, Lee H, Hwang S, et al.Effect of capsaicinoids in hot pepper powder on microbial community and free sugar during kimchi fermentation[J].Journal of Food Science, 2021, 86(7):3195-3204.
[11] Cai W C, Wang Y R, Hou Q C, et al.Rice varieties affect bacterial diversity, flavor, and metabolites of Zha-chili[J].Food Research International, 2021, 147:110556.
[12] 张雅琳, 刘廷锐, 朱文优, 等.基于Illumina MiSeq高通量测序技术解析四川麸醋发酵过程中微生物菌群结构[J].中国食品学报, 2022, 22(6):299-306.Zhang Y L, Liu T R, Zhu W Y, et al.Analysis of microbial community structure in Sichuan bran vinegar fermentation based on illumina MiSeq high-throughput sequencing technology[J].Journal of Chinese Institute of Food Science and Technology, 2022, 22(6):299-306.
[13] 李娜, 崔梦君, 倪慧, 等.基于Illumina MiSeq高通量测序技术分析高温大曲发酵过程中真菌群落结构演替规律[J].中国酿造, 2025, 44(5):169-174.Li N, Cui M J, Ni H, et al.Analysis of fungal community succession during high-temperature Daqu fermentation process based on Illumina MiSeq high-throughput sequencing technology[J].China Brewing, 2025, 44(5):169-174.
[14] 杨晨, 柯悦, 黄锶钘, 等.不同地区鲊广椒细菌多样性比较研究[J].食品工业科技, 2023, 44(10):145-150.Yang C, Ke Y, Huang S X, et al.Comparative study on bacterial diversity of Zha-chili in different regions[J].Science and Technology of Food Industry, 2023, 44(10):145-150.
[15] Chen J, Huang Y B, Wang X Y, et al.Revealing core functional microorganisms in the fermentation process of Qicaipaojiao (Capsicum annuum L.) based on microbial metabolic network[J].Food Research International, 2024, 187:114315.
[16] Chen M J, Qin Y Y, Deng F M, et al.Illumina MiSeq sequencing reveals microbial community succession in salted peppers with different salinity during preservation[J].Food Research International, 2021, 143:110234.
[17] 周罗娜, 刘辉, 王梅, 等.基于Illumina Miseq高通量测序分析贵州韭菜红酸汤微生物菌群多样性[J].中国酿造, 2025, 44(3):87-92.Zhou L N, Liu H, Wang M, et al.Analysis of microbial flora diversity of leek red sour soup in Guizhou based on Illumina MiSeq high-throughput sequencing[J].China Brewing, 2025, 44(3):87-92.
[18] Liao H, Luo Y, Huang X L, et al.Dynamics of quality attributes, flavor compounds, and microbial communities during multi-driven-levels chili fermentation:Interactions between the metabolome and microbiome[J].Food Chemistry, 2023, 405:134936.
[19] 朱作华, 石志刚, 谢纯良, 等.不同温度条件下湘西苞谷酸发酵过程主要营养品质变化[J].中国酿造, 2019, 38(1):49-53.Zhu Z H, Shi Z G, Xie C L, et al.Effect of different temperature conditions on nutrition quality of Baogusuan during the fermentation[J].China Brewing, 2019, 38(1):49-53.
[20] 肖何, 王蓉蓉, 陈梦娟, 等.湖南不同地区农家剁辣椒风味成分比较分析[J].食品工业科技, 2022, 43(22):310-318.Xiao H, Wang R R, Chen M J, et al.Comparison and analysis of the flavor components of chopped peppers from farmhouses in different regions of Hunan[J].Science and Technology of Food Industry, 2022, 43(22):310-318.
[21] 赵芳, 周康宁, 郝莉花, 等. 基于高通量测序的预制菜微生物菌群结构分析[J]. 食品与发酵工业, 2025, 51(24):178-186.Zhao F, Zhou K N, Hao L H, et al. Analysis of microbial community structure of precooked dishes based on high-throughput sequencing technology[J]. Food and Fermentation Industries, 2025, 51(24):178-186.
[22] 尹小庆. 生香酵母对鲊辣椒品质提升及DHS-Ⅳ体外消化特性的研究[D].重庆:西南大学, 2021.Yin X Q.Study on quality improvement of Zha chili by aroma-producing yeast and in vitro digestion characteristics of DHS-Ⅳ[D].Chongqing:Southwest University, 2021.
[23] 葛英亮, 王艺臻, 仲瑞文, 等. 基于Illumina PE300高通量测序的传统与工业化生产东北豆酱微生物群落分析[J]. 食品工业科技, 2026, 47(2):217-226.Ge Y L, Wang Y Z, Zhong R W, et al. Microbial community analysis of northeast soybean paste produced traditionally and commercially based on Illumina PE300 high-throughput sequencing[J]. Science and Technology of Food Industry, 2026, 47(2):217-226.
[24] Zhang S, Zhang Y C, Wu L H, et al.Characterization of microbiota of naturally fermented sauerkraut by high-throughput sequencing[J].Food Science and Biotechnology, 2023, 32(6):855-862.
[25] Huang L H, Tang Y Y, Zheng J, et al.Relationship between the dynamics of flavor compounds and microbial succession in the natural fermentation of Zhalajiao, a popular traditional Chinese fermented chili paste[J].Foods, 2023, 12(20):3849.
[26] Dong W W, Shen H Y, Liu H M, et al.Unraveling the microbial community and succession during Zha-chili fermentation and their relationships with flavor formation[J].Food Research International, 2022, 157:111239.
[27] Chen Z A, Geng Y Y, Wang M, et al.Relationship between microbial community and flavor profile during the fermentation of chopped red chili (Capsicum annuum L.)[J].Food Bioscience, 2022, 50:102071.
[28] Liu S, Hu J L, Zhong Y D, et al.A review:Effects of microbial fermentation on the structure and bioactivity of polysaccharides in plant-based foods[J].Food Chemistry, 2024, 440:137453.
[29] Yang L, Yang H L, Tu Z C, et al.High-throughput sequencing of microbial community diversity and dynamics during Douchi fermentation[J].PLoS One, 2016, 11(12):e0168166.
[30] 叶艳, 苏伟, 王倩, 等.传统霉菌发酵与接种发酵豆豉风味物质的比较分析[J].食品科学, 2016, 37(20):86-94.Ye Y, Su W, Wang Q, et al.Comparison of aroma compounds in traditional fermented and inoculated Douchies, a Chinese traditional fermented soybean food[J].Food Science, 2016, 37(20):86-94.
[31] 向秀连, 赵慧君, 王玉荣, 等.食盐添加对鲊广椒感官品质及细菌类群的影响[J].食品工业科技, 2023, 44(17):108-114.Xiang X L, Zhao H J, Wang Y R, et al.The effect of salt addition on sensory quality and bacterial structure of Zhaguangjiao[J].Science and Technology of Food Industry, 2023, 44(17):108-114.
[32] Cai W C, Tang F X, Wang Y R, et al.Bacterial diversity and flavor profile of Zha-chili, a traditional fermented food in China[J].Food Research International, 2021, 141:110112.
[33] Li M L, Xu X X, Bi S, et al.Identification and validation of core microbes associated with key aroma formation in fermented pepper paste (Capsicum annuum L.)[J].Food Research International, 2023, 163:112194.
[34] Marini E, Magi G, Mingoia M, et al.Antimicrobial and anti-virulence activity of capsaicin against erythromycin-resistant, cell-invasive group a streptococci[J].Frontiers in Microbiology, 2015, 6:1281.
[35] Li M L, Lao F, Pan X, et al.Insights into the mechanisms driving microbial community succession during pepper fermentation:Roles of microbial interactions and endogenous environmental changes[J].Food Research International, 2024, 179:114033.
[36] Guo Z, Wang Y R, Xiang F S, et al.Evaluating the flavor and divergent bacterial communities in corn-based Zha-chili[J].Food Bioscience, 2022, 46:101563.
[37] 王玉荣, 王鑫, 圣群航, 等.鲊广椒源乳酸菌新物种对鲊广椒品质影响及其作用机制研究[J].食品与发酵工业, 2025, 51(16):90-97.Wang Y R, Wang X, Sheng Q H, et al.Effects of new species of lactic acid bacteria from Zha-chili on quality of Zha-chili and their mechanism[J].Food and Fermentation Industries, 2025, 51(16):90-97.