近年来关于纤维素酶的研究引发了人们的广泛关注,如今商品化纤维素酶已广泛应用于食品工业、动物饲料、生物能源等领域[1],具有极为广阔的应用前景。纤维素酶是一种复合酶系,主要包括外切葡聚糖酶、内切葡聚糖酶和β-葡萄糖苷酶这3种酶[2],在这些酶的协同催化作用下,可以使难以利用的纤维素降解,与传统的物化处理方式相比,纤维素酶降解纤维素具有转化率高、副产物少、反应条件温和、能耗低等优点[3]。纤维素酶来源广泛,细菌、真菌、植物的某些组织均能产生[4]。目前用于生产纤维素酶的主要菌株是丝状真菌[5],其中里氏木霉是较好的纤维素酶生产菌,该菌安全无毒、遗传性状稳定,能高效合成并分泌完整的纤维素酶系[6],已被广泛应用于纤维素酶制剂的生产。
已有研究表明,纤维素酶合成受碳氮源供给、发酵时间、氧化应激等多重因素调控[7-9]。碳氮源类型和浓度会影响微生物的生长速率和代谢途径[10],Li等[11]分别使用槐糖和乳糖作为诱导剂,测定发酵144 h时纤维素酶活力,发现槐糖诱导是乳糖诱导的10倍以上。祖彩霞等[12]通过优化里氏木霉发酵培养基中的碳氮源,得到黄豆饼粉、玉米芯、玉米浆的最优组合,其比酶活力达到(10.65±0.50) U/mL。除碳氮源之外,在菌体生长和产酶过程中也会发生氧化应激,影响着细胞和酶的结构[13-14]。Wang等[15]发现活性氧积累不利于纤维素酶合成,而二甲双胍可减少活性氧来增强纤维素酶活性。此外,里氏木霉的酶系组成与活性还可通过遗传改造进行优化。Xyr1、Ace3、Hap2/3/5复合体等调控因子通过不同机制共同调节纤维素酶的合成[16]。Pirare等[17]将xyr1、ace3和clr2协同编排后增强了纤维素酶的诱导和产生。Jiang等[18]将嗜热衣原体cbh1基因替换里氏木霉cbh1基因,纤维素酶活性提高了约1.9倍。因此,在里氏木霉发酵产纤维素酶的过程中,了解菌株的发酵特征和相关基因的表达情况,选择适宜的发酵工艺和调控因子,对于提高产酶效率具有重要意义。
本研究通过测定里氏木霉Ex-26发酵过程中的纤维素酶活性、蛋白质浓度、氧化损伤产物等相关生化指标,了解其发酵特征;并结合转录组测序技术,分析发酵产酶关键期72 h和产酶效率显著降低144 h基因差异表达情况。重点探讨纤维素酶编码基因、调控因子、碳氮代谢及氧化应激相关基因的表达变化,揭示里氏木霉产酶效率下降的原因,为优化发酵工艺和菌株分子改造提供理论支持。
1 材料与方法
1.1 材料与试剂
1.1.1 实验菌株与培养基
菌株:里氏木霉(Trichoderma reesei)Ex-26,安琪酵母股份有限公司。
发酵培养基(g/L):葡萄糖5、乳糖3、玉米浆5、(NH4)2SO4 5.8、KH2PO4 3.3、MgSO4 1、CaCl2 0.7、(NH4)2HPO4 2.5、柠檬酸0.47、FeSO4 0.5、B1 0.2、B2 0.2、聚醚类消泡剂(polyether antifoam agent, PPE)0.5,121 ℃灭菌30 min。
补料方案(g/L):槐糖混合液400、玉米浆15、MgSO4 1、KH2PO4 4.3、CaCl2 0.5、B1 0.2、B2 0.2、PPE 0.5,121 ℃灭菌30 min。
B1、B2:微量元素混合液(具体组成因技术保密未公开)。
槐糖混合液:核心有效成分为槐糖(具体组成因技术保密未公开),安琪酵母股份有限公司自主研发工艺制备,制备后经高压蒸汽灭菌(121 ℃,20 min)处理后备用,其制备过程符合里氏木霉发酵产纤维素酶的诱导物使用规范。
1.1.2 实验试剂
葡萄糖,河北金锋淀粉糖醇有限公司;乳糖,美国LEPRINO FOODS公司;玉米浆,临朐县华懋饲料有限公司;柠檬酸、(NH4)2SO4、CaCl2、KH2PO4、(NH4)2HPO4、MgSO4、FeSO4,国药集团化学试剂有限公司;Bradford蛋白浓度测定试剂盒、丙二醛含量检测试剂盒,北京索莱宝科技有限公司;Megan通用型RNA抽提试剂盒,广州美基生物科技有限公司。
1.2 仪器与设备
SW-CJ-2FD型双人单面净化工作台,苏州净化设备有限公司;SNB-1数字式黏度计,上海尼润智能科技有限公司;MJ-150型生化培养箱,广州LEYTE公司;UVmini-1285型紫外分光光度计,苏州岛津有限公司;Infinite M Plex型酶标仪,上海帝肯有限公司;3K15台式冷冻离心机,德国Sigma公司;42 L发酵罐,德国赛多利斯公司。
1.3 实验方法
1.3.1 发酵培养条件
将种子液按10%接种量接入42 L发酵罐,初始温度29 ℃,初始搅拌速率200 r/min,初始通气量0.8 vvm,标定溶氧100%,开始发酵过程中,逐步提高搅拌速率和通气量维持溶氧在30%及以上,搅拌速率上限为750 r/min,通气比上限为1.0 vvm。待到发酵培养基中糖耗尽溶氧回升时,采取溶氧联控补料,每隔12 h取样,总发酵时间192 h。
1.3.2 纤维素酶活性测定
参照NY/T 912—2020《饲料添加剂纤维素酶活力的测定 分光光度法》测定酶活力。每个样品取3个平行,12 000 r/min离心3 min,收集上清液。将上清液与底物羧甲基纤维素钠溶液混合,37 ℃反应30 min。加入DNS试剂混匀后,沸水浴5 min,冷却至室温后定容,以标准空白样为空白对照,在540 nm处测定吸光度。
1.3.3 蛋白质浓度测定
使用Bradford蛋白浓度测定试剂盒测定蛋白浓度。每个样品取3个平行,12 000 r/min离心3 min,收集上清液,根据试剂盒说明书操作,用酶标仪测定595 nm处的吸光度。
1.3.4 生物量测定
快速滤纸称重并做好标记,量取均匀的发酵液50 mL,于已称重的快速滤纸上抽滤。抽滤后滤饼与滤纸一起在105 ℃烘至绝干后,用电子天平称量。每个样品取3个平行,按照公式(1)计算。
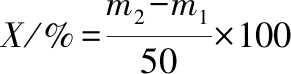
(1)
式中:X,发酵液干重百分含量,%;m1,抽滤前滤纸的质量,g;m2,烘干后滤纸与滤饼的质量,g。
1.3.5 发酵液黏度测定
用100 mL量筒量取均匀发酵液100 mL置于烧杯中,每个样品取3个平行,使用黏度计测定发酵液黏度。
1.3.6 丙二醛测定
每个样品取3个平行,12 000 r/min离心3 min,弃上清液,然后用PBS洗涤菌体3次,于4 ℃,12 000 r/min离心3 min,弃上清液,菌体按照试剂盒说明书操作,用酶标仪测532 nm和600 nm处的吸光度。
1.3.7 转录组测序样本的制备及测序
取发酵72 h和144 h样品分别作为对照组和实验组,每个样品做3个平行,于4 ℃,12 000 r/min离心3 min,弃上清液,然后用PBS洗涤菌体3次,于4 ℃,12 000 r/min离心3 min,弃上清液,菌体用液氮速冻30 min后保存于-80 ℃冰箱中,使用Megan通用型RNA抽提试剂盒提取总RNA,质检合格后送至苏州金唯智生物科技有限公司进行文库构建及测序。
1.3.8 原始数据质控及差异基因表达分析
测序数据使用软件FastQC(v0.10.1)分析得到高质量测序数据。基因差异分析使用DESeq2(V1.26.0),对检测结果按照差异显著性标准[差异基因表达变化2倍以上且Qvalue (fdr, padj)≤0.05]进行筛选,统计基因显著性差异表达情况。并对其进行GO功能聚类分析和KEGG Pathway富集分析。GO富集分析方法为GOseq,显著富集筛选标准为over_represented_Pvalue≤0.05。Pathway显著性富集分析以KEGG Pathway为单位,应用超几何检验,找出与整个基因组背景相比,在差异表达基因中显著性富集的Pathway,显著富集的筛选标准为Qvalue≤0.05。
1.3.9 实时定量荧光PCR分析
选取8个显著差异基因进行RT-qPCR验证转录组结果的准确性,其中包括纤维素酶调控基因、合成分泌基因、氧化应激基因等。引物合成由苏州金唯智生物科技有限公司完成。使用逆转录试剂盒SynScript®Ⅲ RT SuperMix for qPCR进行逆转录扩增样品RNA,以里氏木霉sar1[19]为内参基因进行RT-qPCR反应。每个样品设置3个生物学重复。采用2-ΔΔCT法计算基因相对表达量,基因引物序列如表1所示。
表1 目的基因荧光定量PCR引物序列
Table 1 Primer sequences for quantitative real-time PCR of target genes
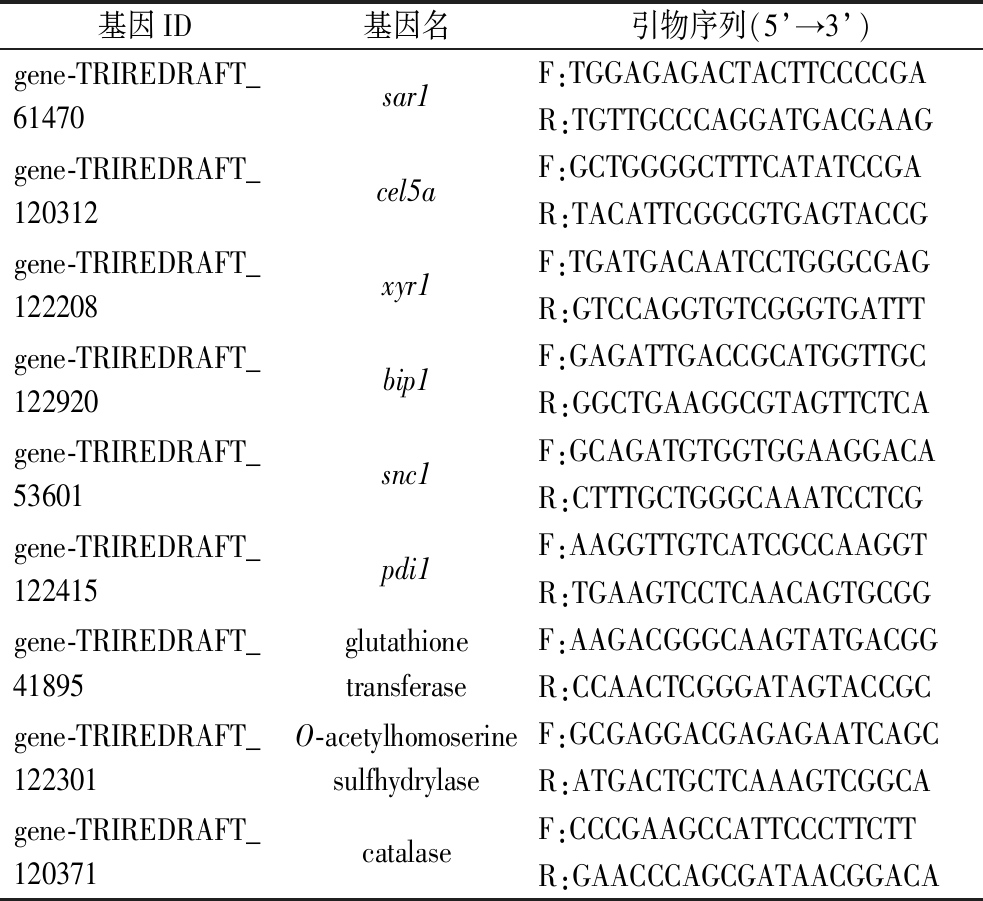
基因ID基因名引物序列(5’→3’)gene-TRIREDRAFT_61470sar1F:TGGAGAGACTACTTCCCCGAR:TGTTGCCCAGGATGACGAAGgene-TRIREDRAFT_120312cel5aF:GCTGGGGCTTTCATATCCGAR:TACATTCGGCGTGAGTACCGgene-TRIREDRAFT_122208xyr1F:TGATGACAATCCTGGGCGAGR:GTCCAGGTGTCGGGTGATTTgene-TRIREDRAFT_122920bip1F:GAGATTGACCGCATGGTTGCR:GGCTGAAGGCGTAGTTCTCAgene-TRIREDRAFT_53601snc1F:GCAGATGTGGTGGAAGGACAR:CTTTGCTGGGCAAATCCTCGgene-TRIREDRAFT_122415pdi1F:AAGGTTGTCATCGCCAAGGTR:TGAAGTCCTCAACAGTGCGGgene-TRIREDRAFT_41895glutathione transferaseF:AAGACGGGCAAGTATGACGGR:CCAACTCGGGATAGTACCGCgene-TRIREDRAFT_122301O-acetylhomoserine sulfhydrylaseF:GCGAGGACGAGAGAATCAGCR:ATGACTGCTCAAAGTCGGCAgene-TRIREDRAFT_120371catalaseF:CCCGAAGCCATTCCCTTCTTR:GAACCCAGCGATAACGGACA
2 结果与分析
2.1 生物量、纤维素酶活力与蛋白质浓度
在里氏木霉发酵过程中,前期主要表现为菌体的快速生长和生物量积累,发酵至36 h时,生物量达到11.73%(图1)。此后,生物量增长趋于平缓,而纤维素酶活性开始提升,产酶速率也随之提高,于72 h产酶速率达到峰值,为28.07 U/(mL·h),同时纤维素酶含量也在不断增加,该峰值产酶速率与陈星宇等[20]采用溶氧联控补料工艺所得到的产酶速率[26.17 U/(mL·h)]较为接近,但低于熊鹏等[21]通过优化培养基成分和发酵条件所达到的37.25 U/(mL·h)水平,这可能与当前工艺下诱导效率及菌体合成能力尚未达到最优有关。随着发酵时间延长,产酶速率逐渐减缓,在132 h达到最高酶活力,为2 358.94 U/mL,后出现负增长,而生物量仍保持缓慢累积趋势,这表明菌体代谢重心可能由蛋白合成转向自身维持。此外,发酵周期中蛋白质浓度的动态变化与酶活力变化趋势总体一致,前期蛋白质浓度不断增长,于132 h达到峰值36.39 g/L,之后可能因蛋白质合成与分泌能力下降而明显降低。该结果提示发酵中后期蛋白质分泌系统的维持能力也可能成为影响纤维素酶产量的关键因素。
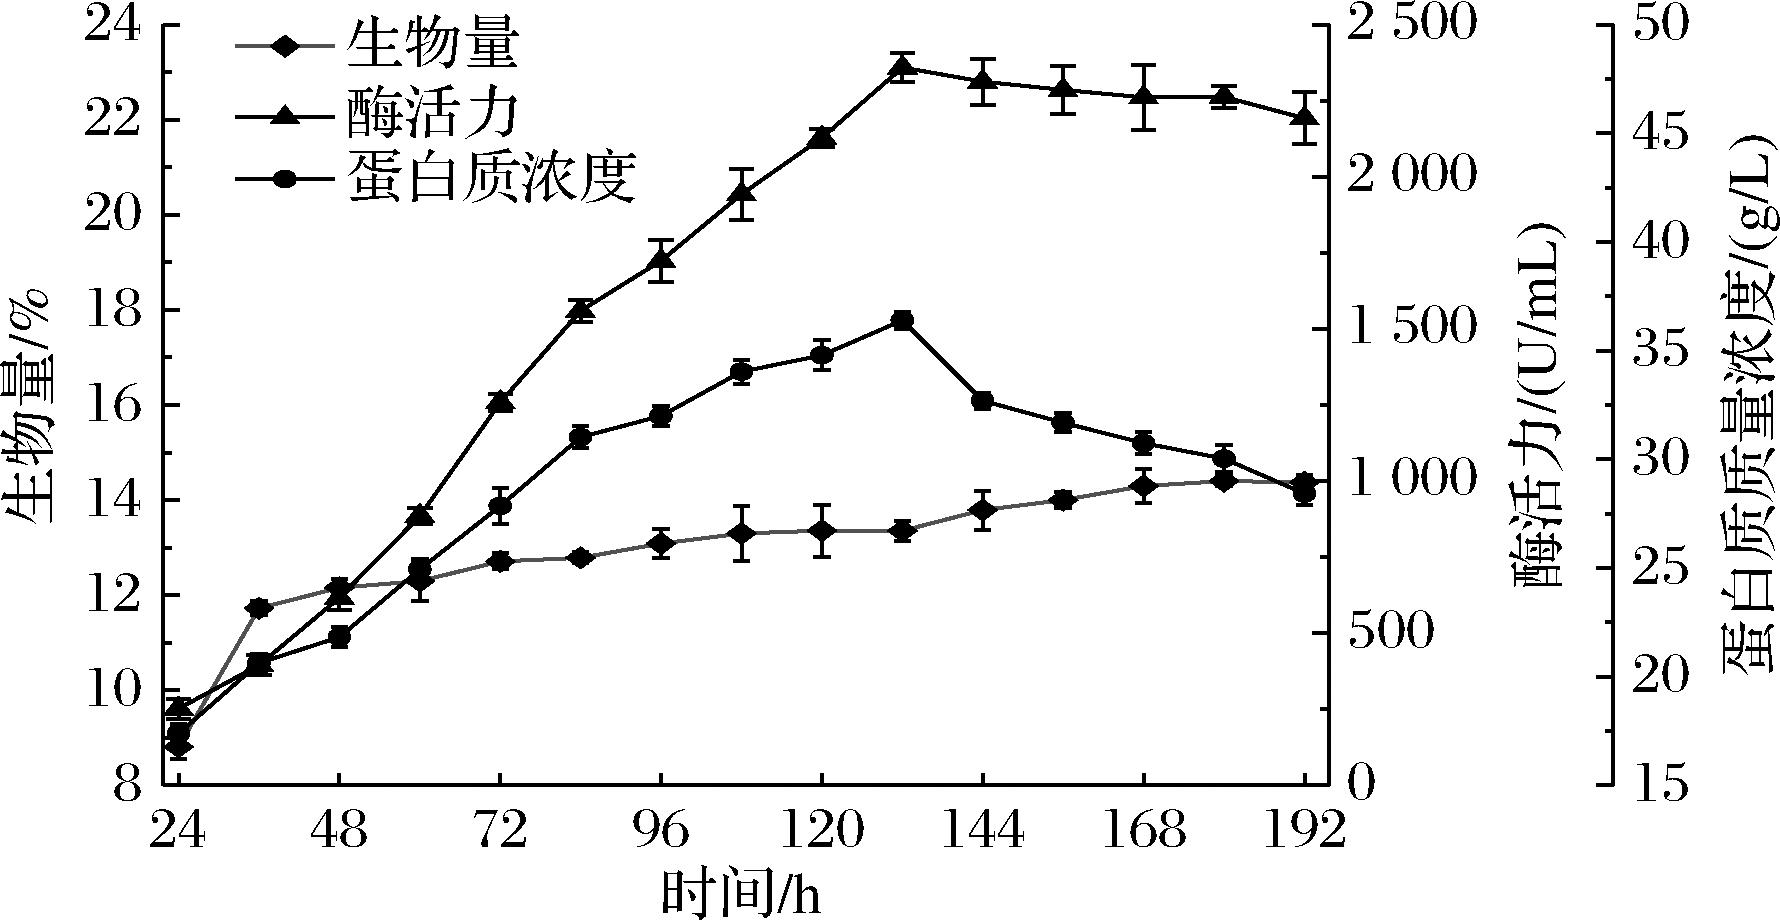
图1 生物量、纤维素酶活力与蛋白质浓度随时间的变化
Fig.1 Temporal changes of biomass, cellulase activity, and protein concentration
2.2 发酵液黏度与补料速率
在整个发酵周期中,发酵液黏度由发酵初期(24 h)的199.67 mPa·s持续上升至发酵末期(192 h)的1 299.33 mPa·s,增幅达5.5倍(图2)。发酵液黏度的持续上升导致氧传递效率的下降,进而可能进一步影响了菌体的有氧代谢效率,并最终间接影响了纤维素酶的合成。这一猜测与已有研究结果相符,高乐等[22]通过在里氏木霉中过表达cdc42基因得到重组菌株,其发酵液黏度降低30%以上,显著提升了体系的传氧传质效率,蛋白分泌量和酶活性也显著提高。此外,发酵液黏度的持续增大间接影响到溶氧联控补料,发酵中后期补料速率呈逐渐下降趋势,结合后续转录组数据中糖转运蛋白基因的表达下调,提示发酵后期菌体的能量供给可能逐渐受限。
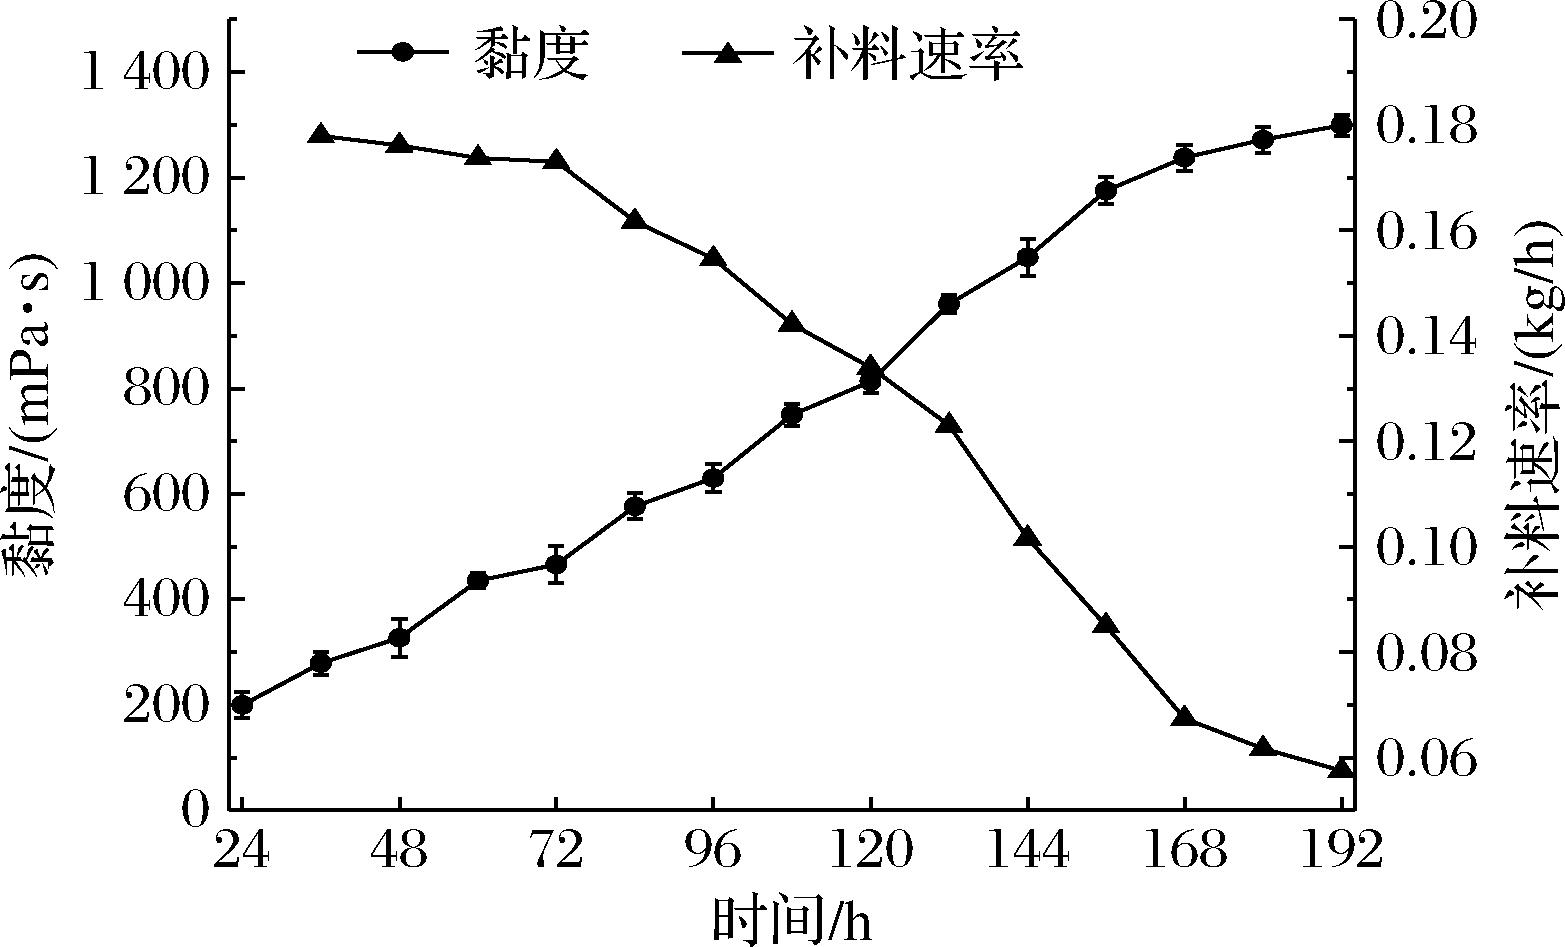
图2 发酵液黏度与补料速率随时间的变化
Fig.2 Temporal changes of fermentation broth viscosity and feeding rate
2.3 丙二醛含量测定
丙二醛作为脂质过氧化的终产物,是反映细胞氧化损伤程度的经典标志性指标[23],其含量变化可直接表征里氏木霉在发酵过程中的氧化应激状态。本研究对发酵过程中丙二醛含量的动态监测结果显示(图3),发酵初期(24 h)丙二醛含量为6.84 nmol/g,处于相对较低水平。但随发酵时间的延长,丙二醛含量持续累积,至192 h时达到28.15 nmol/g,增幅超过3倍。已有研究指出,丙二醛不仅会破坏细胞膜的流动性和通透性,导致细胞稳态失调,还可以直接诱导氧化应激的发生,造成DNA、蛋白质和脂类等生物大分子损伤,最终导致细胞代谢网络紊乱与生理功能衰退[23]。因此,发酵后期丙二醛的积累可能是造成里氏木霉产酶效率下降的重要因素之一。
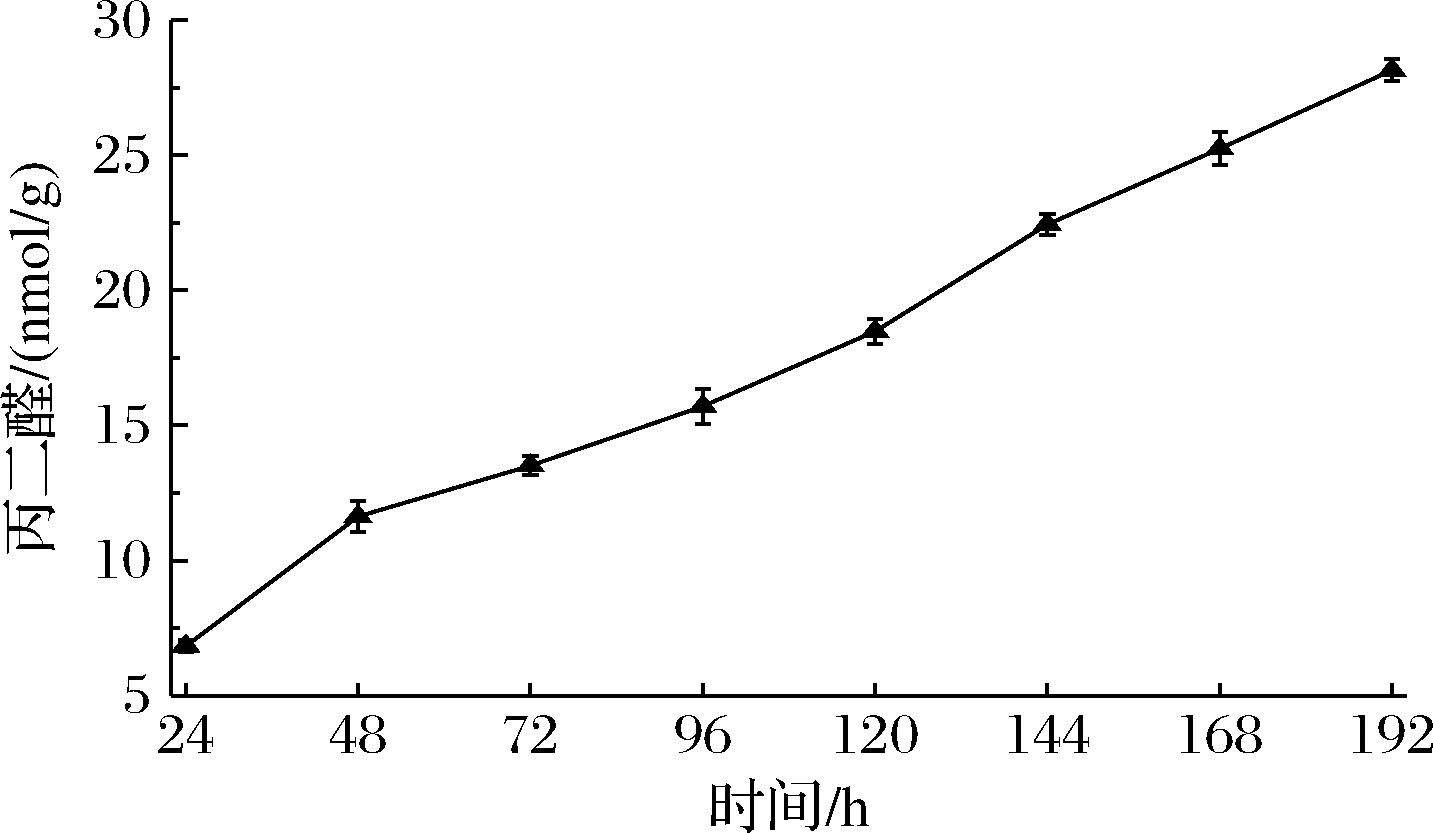
图3 丙二醛含量随时间的变化
Fig.3 Temporal changes of malondialdehyde
2.4 转录组测序数据质量控制及评估
将里氏木霉发酵72 h和144 h的菌体样本进行转录组学测序,测得序列经质控后各样本产生的Reads数量在42 466 222~49 626 978,平均每个样品Q20为97.81%~97.96%,Q30为93.88%~94.21%,GC含量为55.37%~55.76%(表2)。数据评估结果表明过滤后所获得的序列质量较好,可满足后续分析要求。
表2 样本测序数据汇总
Table 2 Summary of sample sequencing data
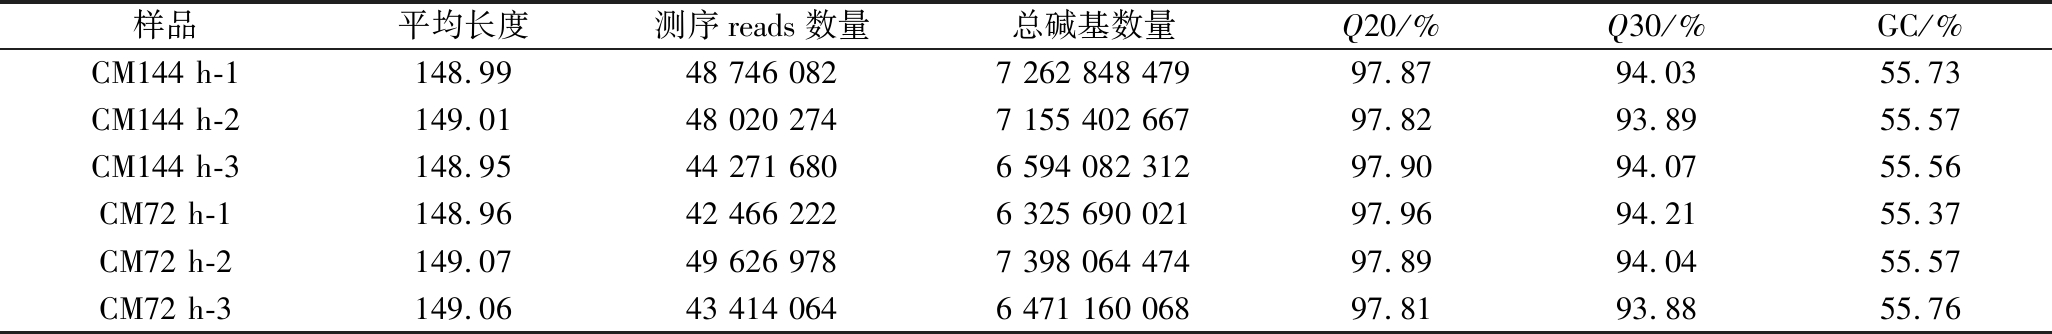
注:Q20、Q30分别表示计算Phred数值大于20、30的碱基占总体碱基的百分比;GC%表示计算碱基G和C的数量总和占总的碱基数量的百分比。
样品平均长度测序reads数量总碱基数量Q20/%Q30/%GC/%CM144 h-1148.9948 746 0827 262 848 47997.8794.0355.73CM144 h-2149.0148 020 2747 155 402 66797.8293.8955.57CM144 h-3148.9544 271 6806 594 082 31297.9094.0755.56CM72 h-1148.9642 466 2226 325 690 02197.9694.2155.37CM72 h-2149.0749 626 9787 398 064 47497.8994.0455.57CM72 h-3149.0643 414 0646 471 160 06897.8193.8855.76
2.5 差异表达基因分析
差异基因筛选结果显示,发酵144 h与72 h之间共有2 773个显著差异基因(图4),其中1 554个下调,1 219个上调。在产酶速率下降的144 h,外切葡聚糖酶、内切葡聚糖酶和β-葡萄糖苷酶等纤维素酶核心编码基因和snc1、PDI等与酶合成分泌相关的基因表达均显著下调,同时xyr1作为关键转录激活因子调控纤维素酶基因的转录[24],该基因下调表达也影响酶的合成速率,这一结果与同期纤维素酶活性的下降相对应。此外,DNA引物酶(gene-TRIREDRAFT_22881)、DNA聚合酶(gene-TRIREDRAFT_53105)、DNA连接酶(gene-TRIREDRAFT_22881)、DNA错配修复蛋白(gene-TRIREDRAFT_61042)、细胞分裂蛋白(gene-TRIREDRAFT_109022)等基因的上调表达与菌体生物量持续积累的结果相对应,说明发酵后期细胞仍保持一定的生长活性。而己糖转运蛋白(gene-TRIREDRAFT_104072)、寡糖转运蛋白(gene-TRIREDRAFT_70644)等基因表达下调,可能暗示细胞对碳源的摄取能力在发酵后期减弱。结合发酵过程糖耗速率降低,说明细胞能量来源逐渐减少,同时三羧酸循环中部分基因[如乙酰辅酶A合成酶(gene-TRIREDRAFT_73774)、顺乌头酸水合酶(gene-TRIREDRAFT_75000)]表达上调,可能反映了细胞在碳源利用上发生了适应性调整,发酵后期代谢产生的能量可能更支持菌体维持而非纤维素酶合成。
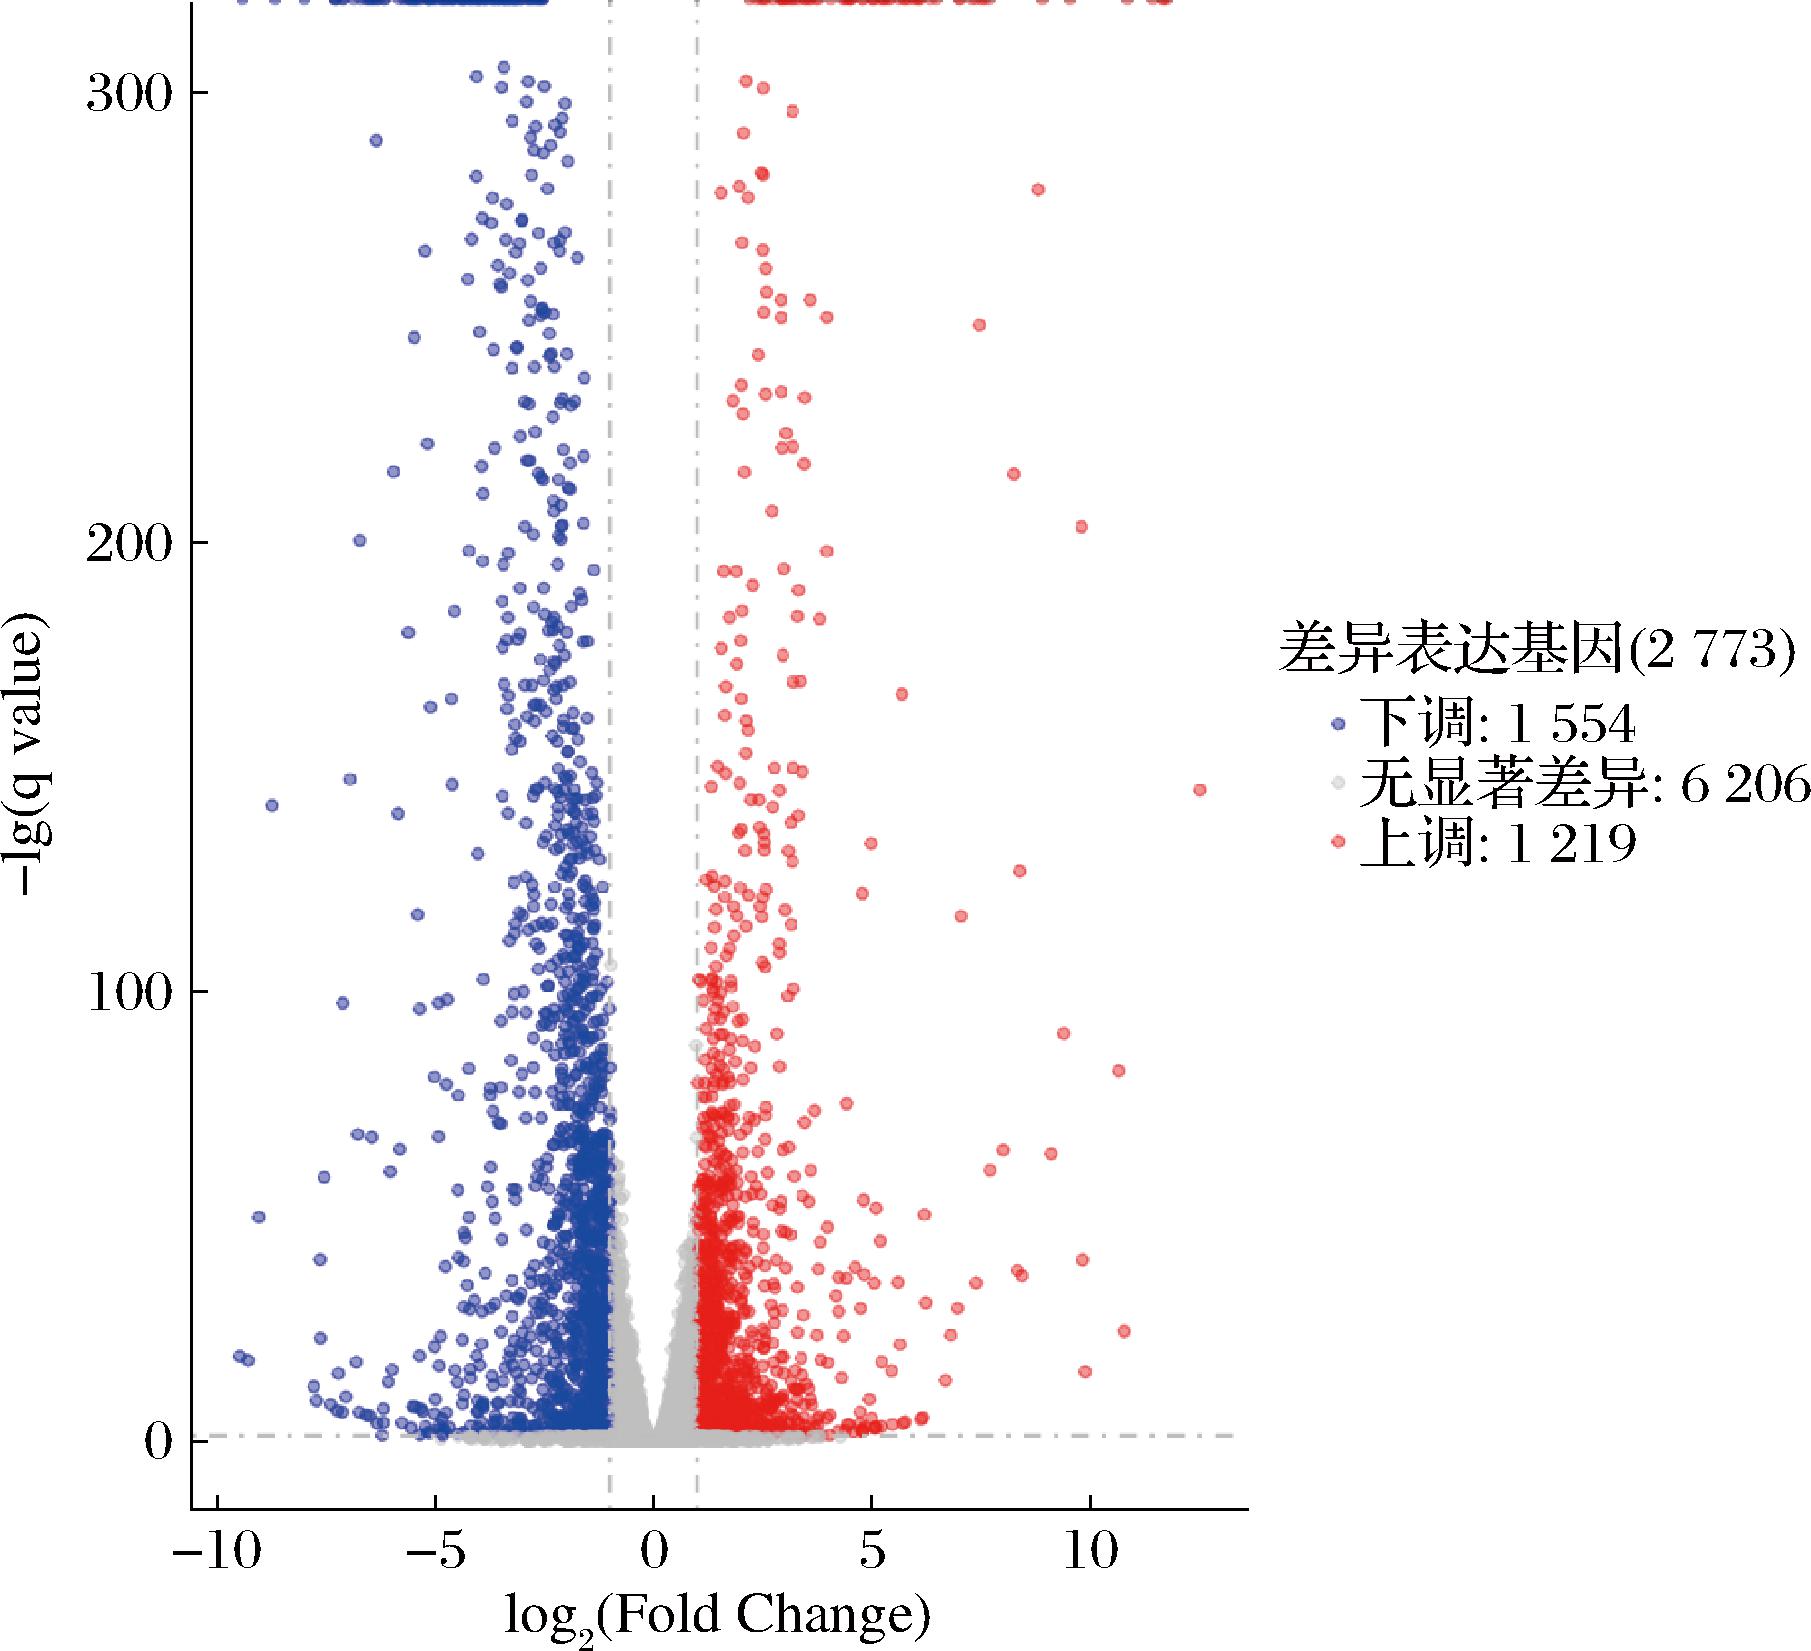
图4 差异表达基因火山图
Fig.4 Volcano plot of differentially expressed genes
2.6 差异基因GO富集分析
GO富集分析显示,发酵144 h相较于72 h,差异基因显著富集于生物过程、细胞组分和分子功能方面(图5)。在生物过程方面,差异基因主要富集在纤维素分解过程、rRNA加工和木聚糖分解过程等。在细胞组分方面,差异基因主要富集在核质、核仁和胞外区等。表明这些基因的表达可能影响了里氏木霉的生长、发育、产酶等生命过程以及细胞与环境的相互作用。在分子功能方面,差异基因主要富集在氧化还原酶活性、纤维素酶活性和跨膜转运蛋白活性等,表明里氏木霉发酵144 h可能在抗氧化应激、物质转运和能量代谢方面的需求发生了变化。综上,这些富集结果从多个方面阐述了发酵144 h里氏木霉在生理活动上的复杂变化。例如,过氧化氢酶和双功能过氧化氢酶等基因的上调与细胞应对氧化应激的需求相符;而snc1(gene-TRIREDRAFT_53601)作为外囊泡复合体的关键组分[25],其在144 h的表达下调则可能影响纤维素酶的分泌效率。
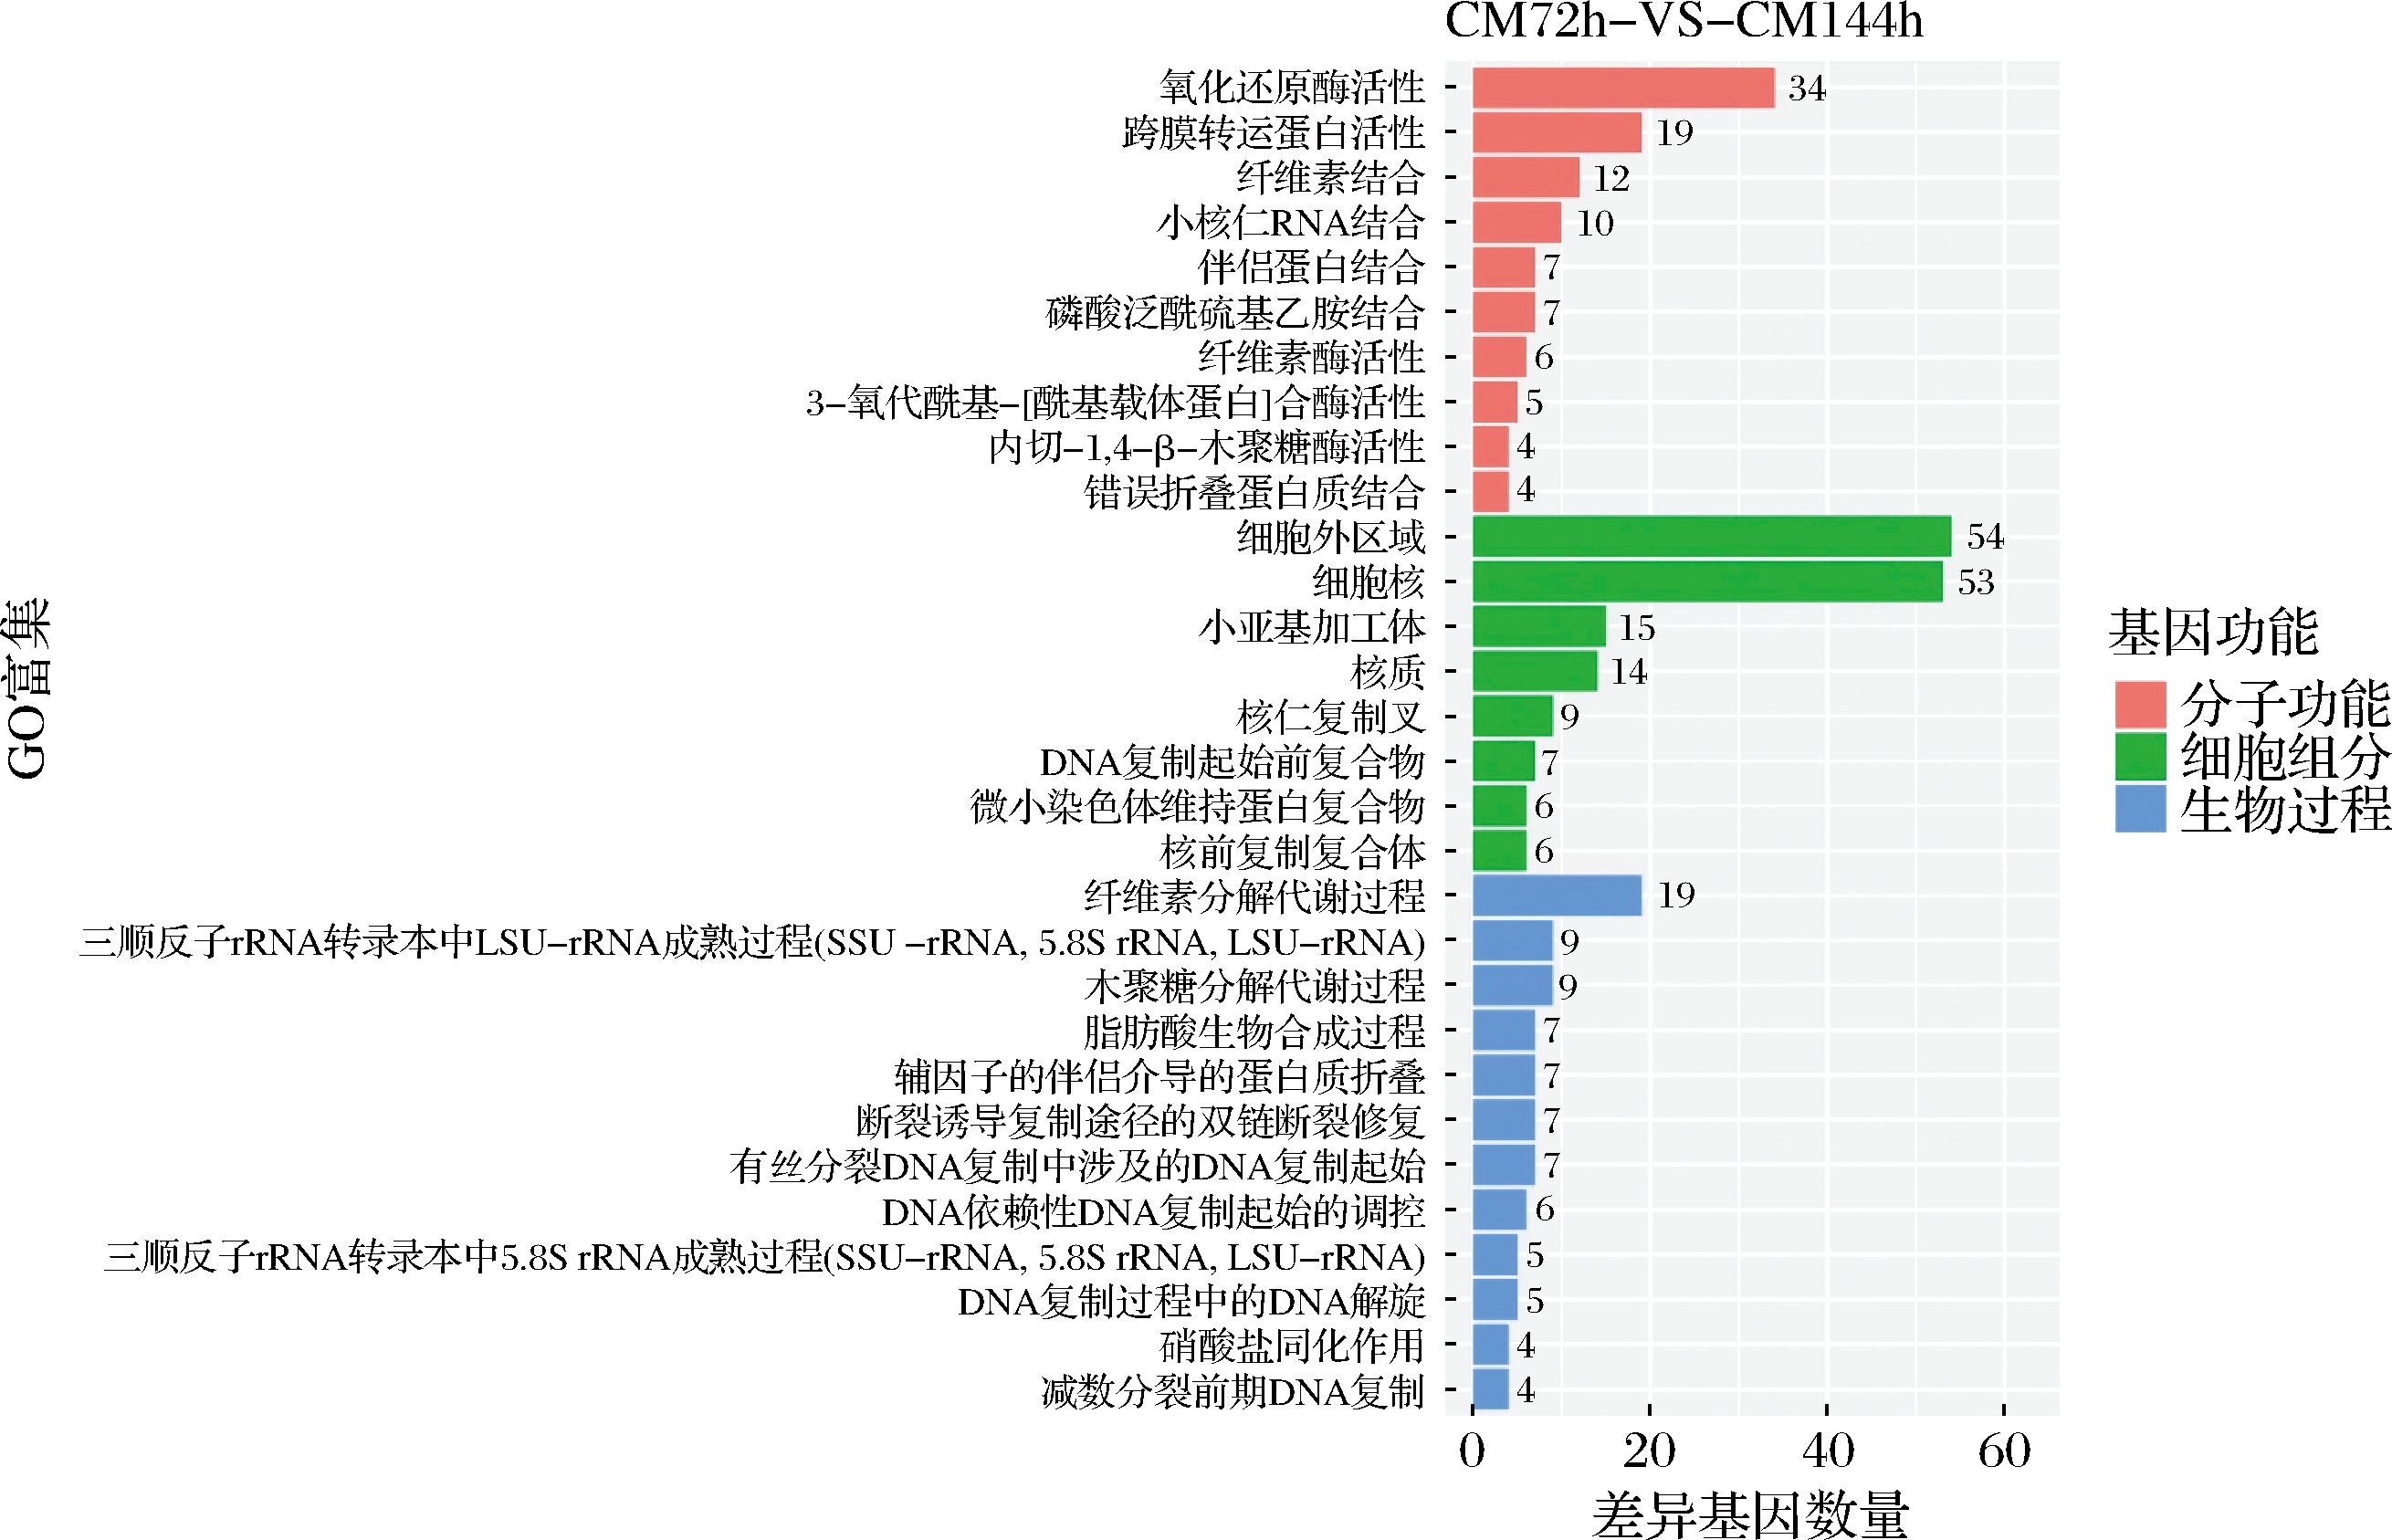
图5 差异表达基因GO富集分析
Fig.5 GO enrichment analysis of differentially expressed genes
2.7 差异基因KEGG富集分析
KEGG通路富集分析显示,发酵144 h与72 h相比,差异基因主要富集在以下通路:代谢通路、次级代谢物的生物合成、淀粉和蔗糖代谢、真核生物核糖体生物合成、内质网蛋白质加工、谷胱甘肽代谢等(图6)。代谢通路和次级代谢产物生物合成通路基因富集程度较高,其中代谢通路共注释到280个基因,次级代谢产物生物合成通路共注释到111个基因,表明差异表达基因主要参与生物分子的合成与细胞代谢调控过程,这些基因相互作用影响了里氏木霉的产酶过程。其中,真核生物核糖体生物合成基因表达的变化影响了核糖体的组装,而核糖体是所有代谢通路相关蛋白合成的基础[26],其合成数量的变化可能影响整体蛋白质合成能力。此外,内质网蛋白质加工与蛋白质的正确折叠和加工效率相关,这对里氏木霉合成纤维素酶至关重要。最后,淀粉和蔗糖代谢、谷胱甘肽代谢等都是真菌生长不可或缺的代谢途径,为里氏木霉的生长提供能量,并参与抗氧化以维持细胞氧化还原平衡。
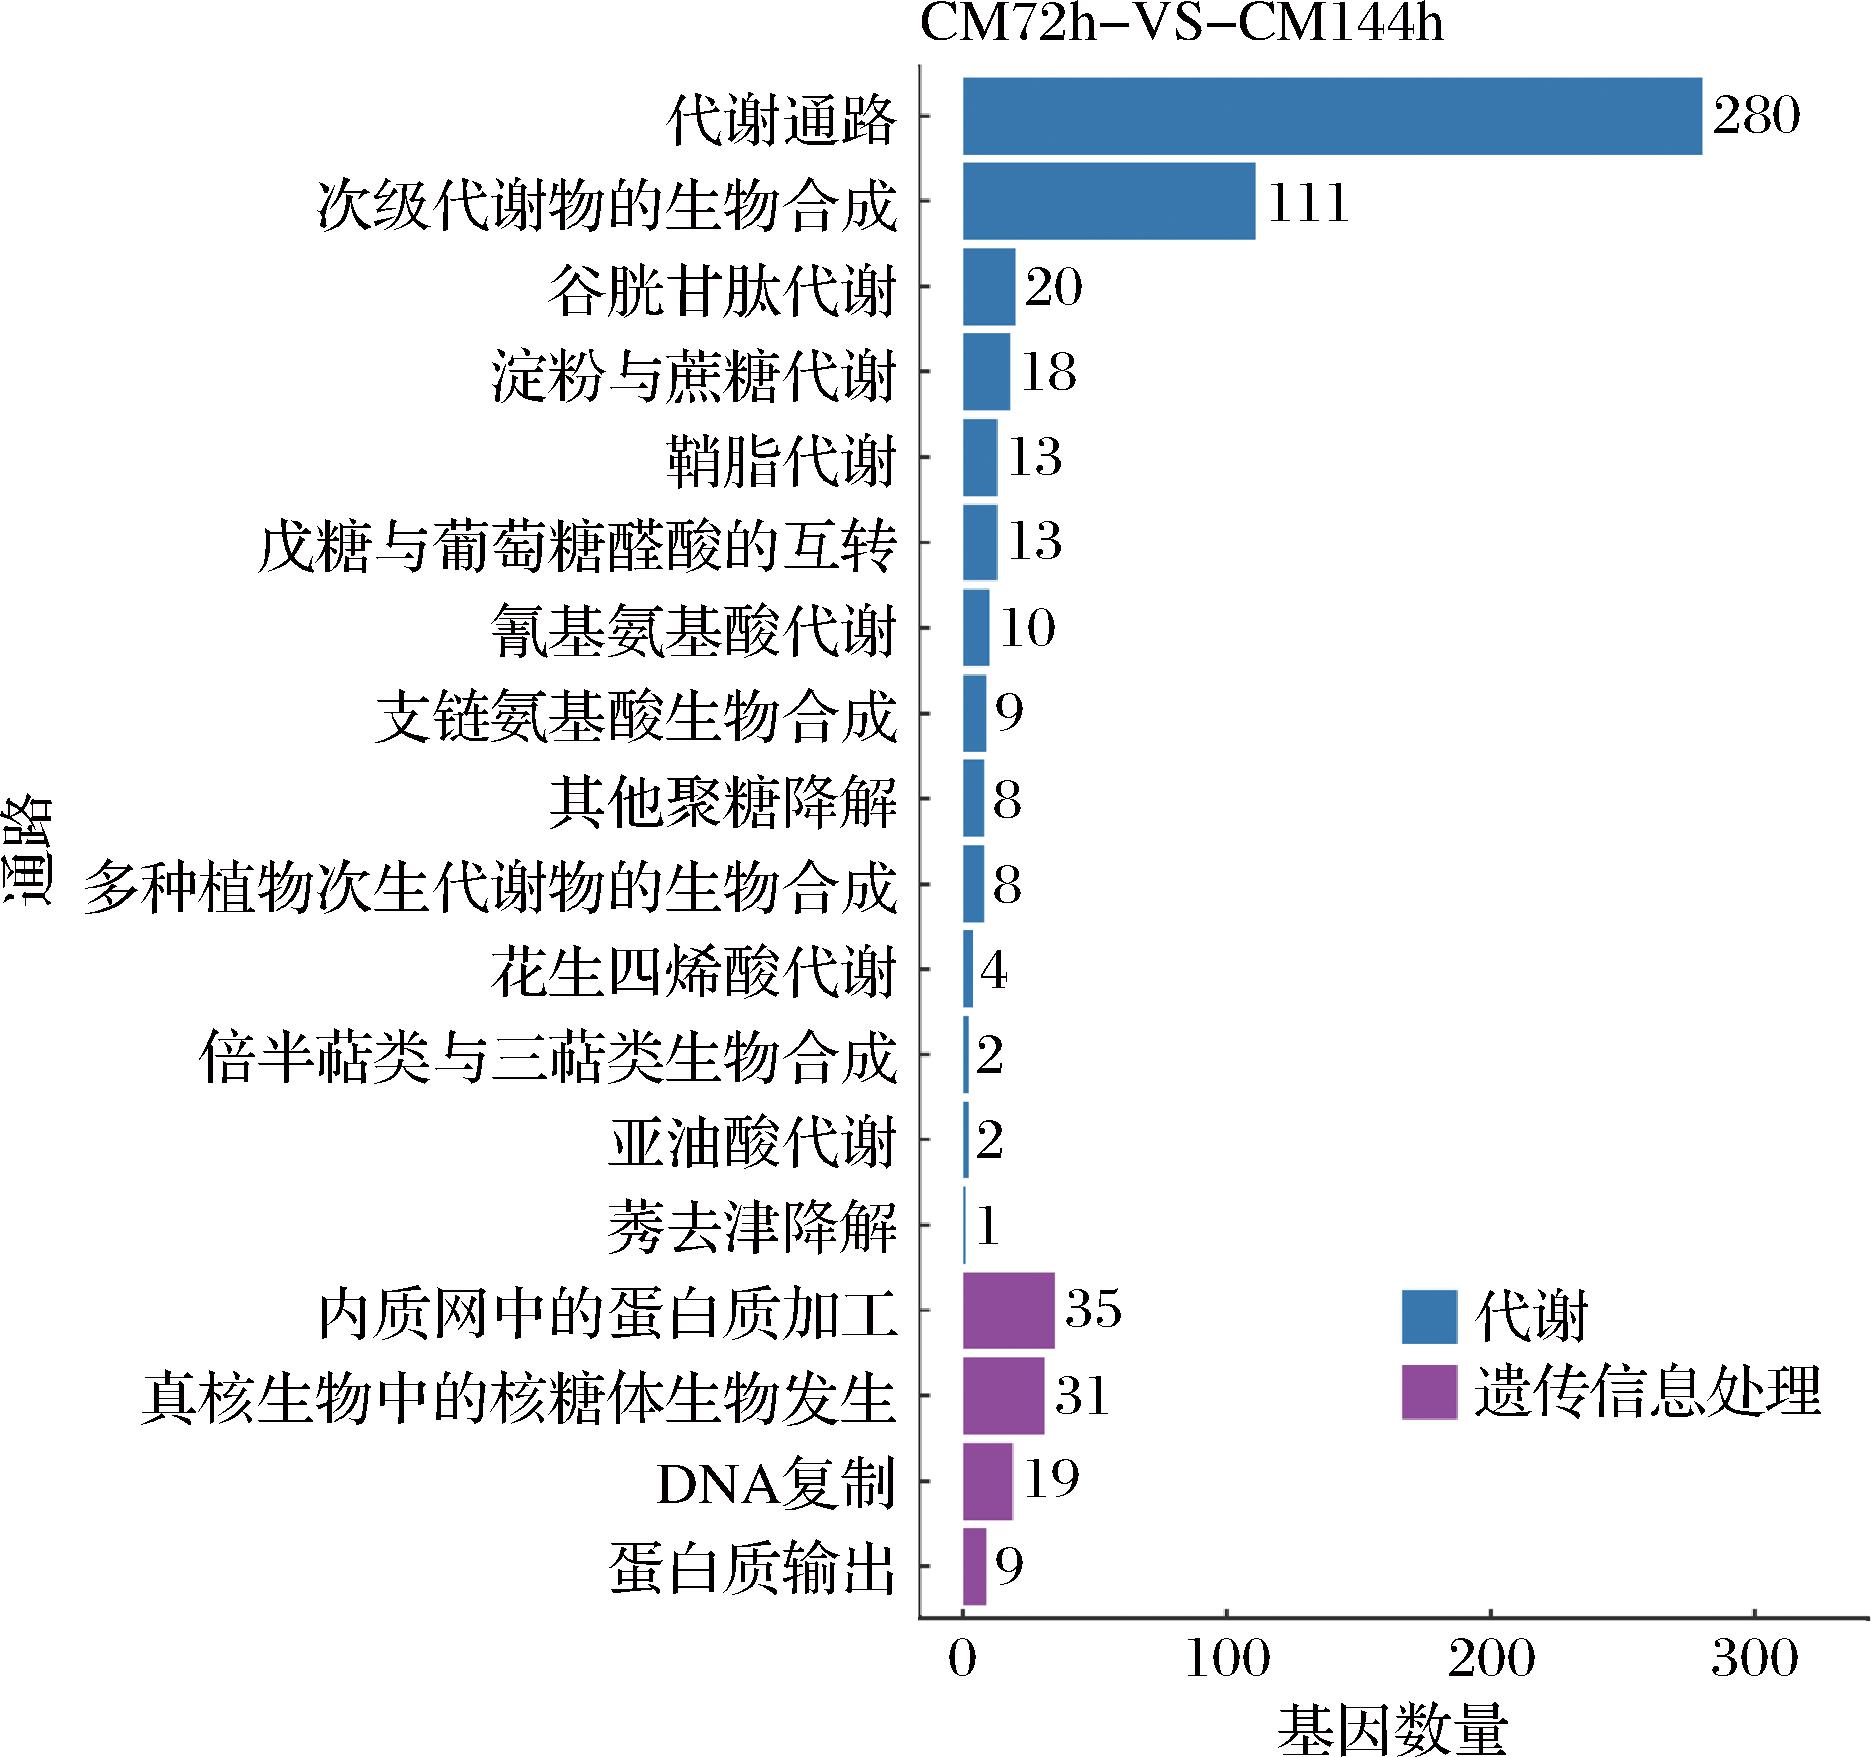
图6 差异表达基因KEGG富集分析
Fig.6 KEGG enrichment analysis of differentially expressed genes
2.8 关键代谢通路及相关基因表达变化
2.8.1 淀粉和蔗糖代谢
有18个差异基因显著富集于淀粉和蔗糖代谢通路中,代谢途径注释分析显示,该通路涉及外切葡聚糖酶、内切葡聚糖酶和β-葡萄糖苷酶这3类纤维素酶(图7)。其中,编码里氏木霉糖苷水解酶(EC:3.2.1)家族的多数差异基因呈现下调表达,例如糖苷水解酶家族13、糖苷水解酶家族5和糖苷水解酶家族7。糖苷水解酶家族的核心功能是通过水解糖苷键将复杂碳水化合物分解为单糖或简单寡糖[27],以供微生物利用。因此,多个糖苷水解酶家族基因和糖转运蛋白基因表达下调,这与发酵后期补料速率下降、耗糖减缓的生理数据相互印证,表明发酵后期碳源可利用性以及能量供给可能受到了限制。
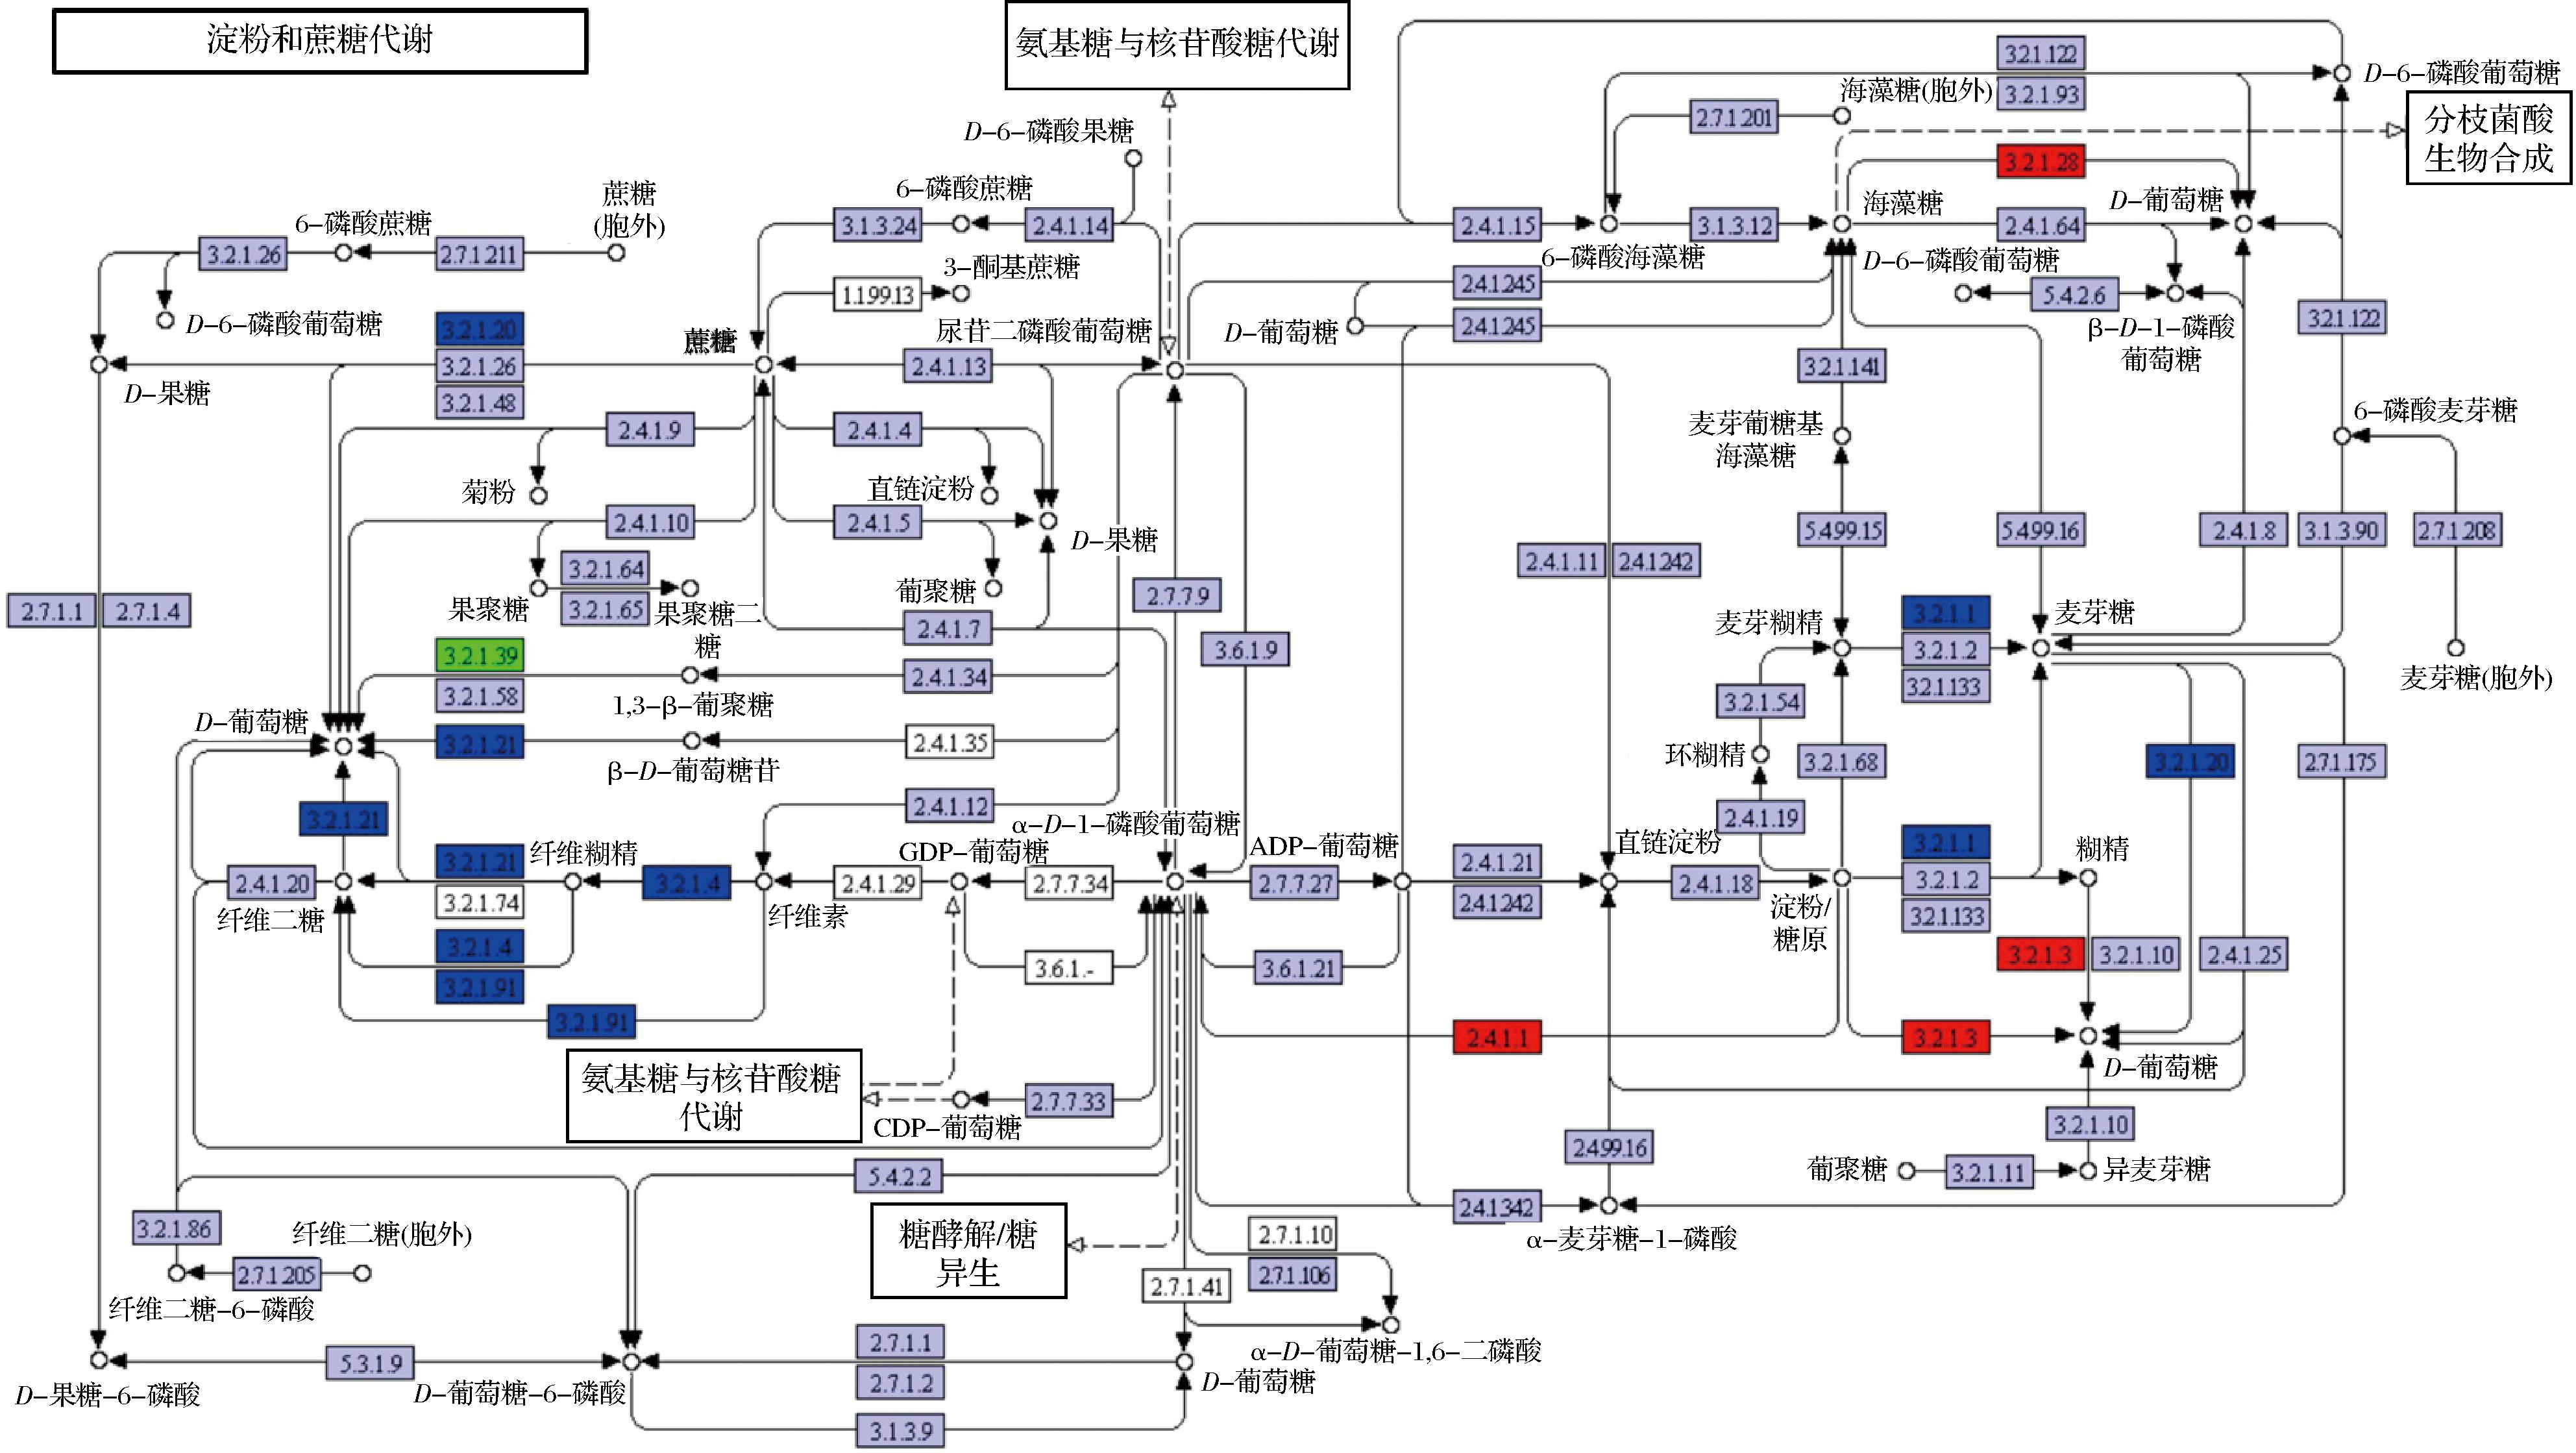
图7 淀粉和蔗糖代谢信号通路差异基因代谢通路注释图
Fig.7 Differentially expressed genes annotation diagram of the starch and sucrose metabolism signaling pathway
注:图中蓝色代表差异基因较72 h在144 h下调表达;红色代表差异基因较72 h在144 h上调表达;绿色代表差异基因较72 h在144 h既上调又下调表达,下同。
2.8.2 蛋白质合成与加工
在真核生物核糖体生物合成通路中,有30个基因显著下调(图8),这些下调表达基因所编码的蛋白在真核生物核仁中,以pre-rRNA为初始模板,经过一系列修饰、组装、切割加工及核质运输过程,最终形成成熟的核糖体亚基[28]。其下调表达可能导致核糖体数量减少,进而影响包括纤维素酶在内的蛋白质合成。
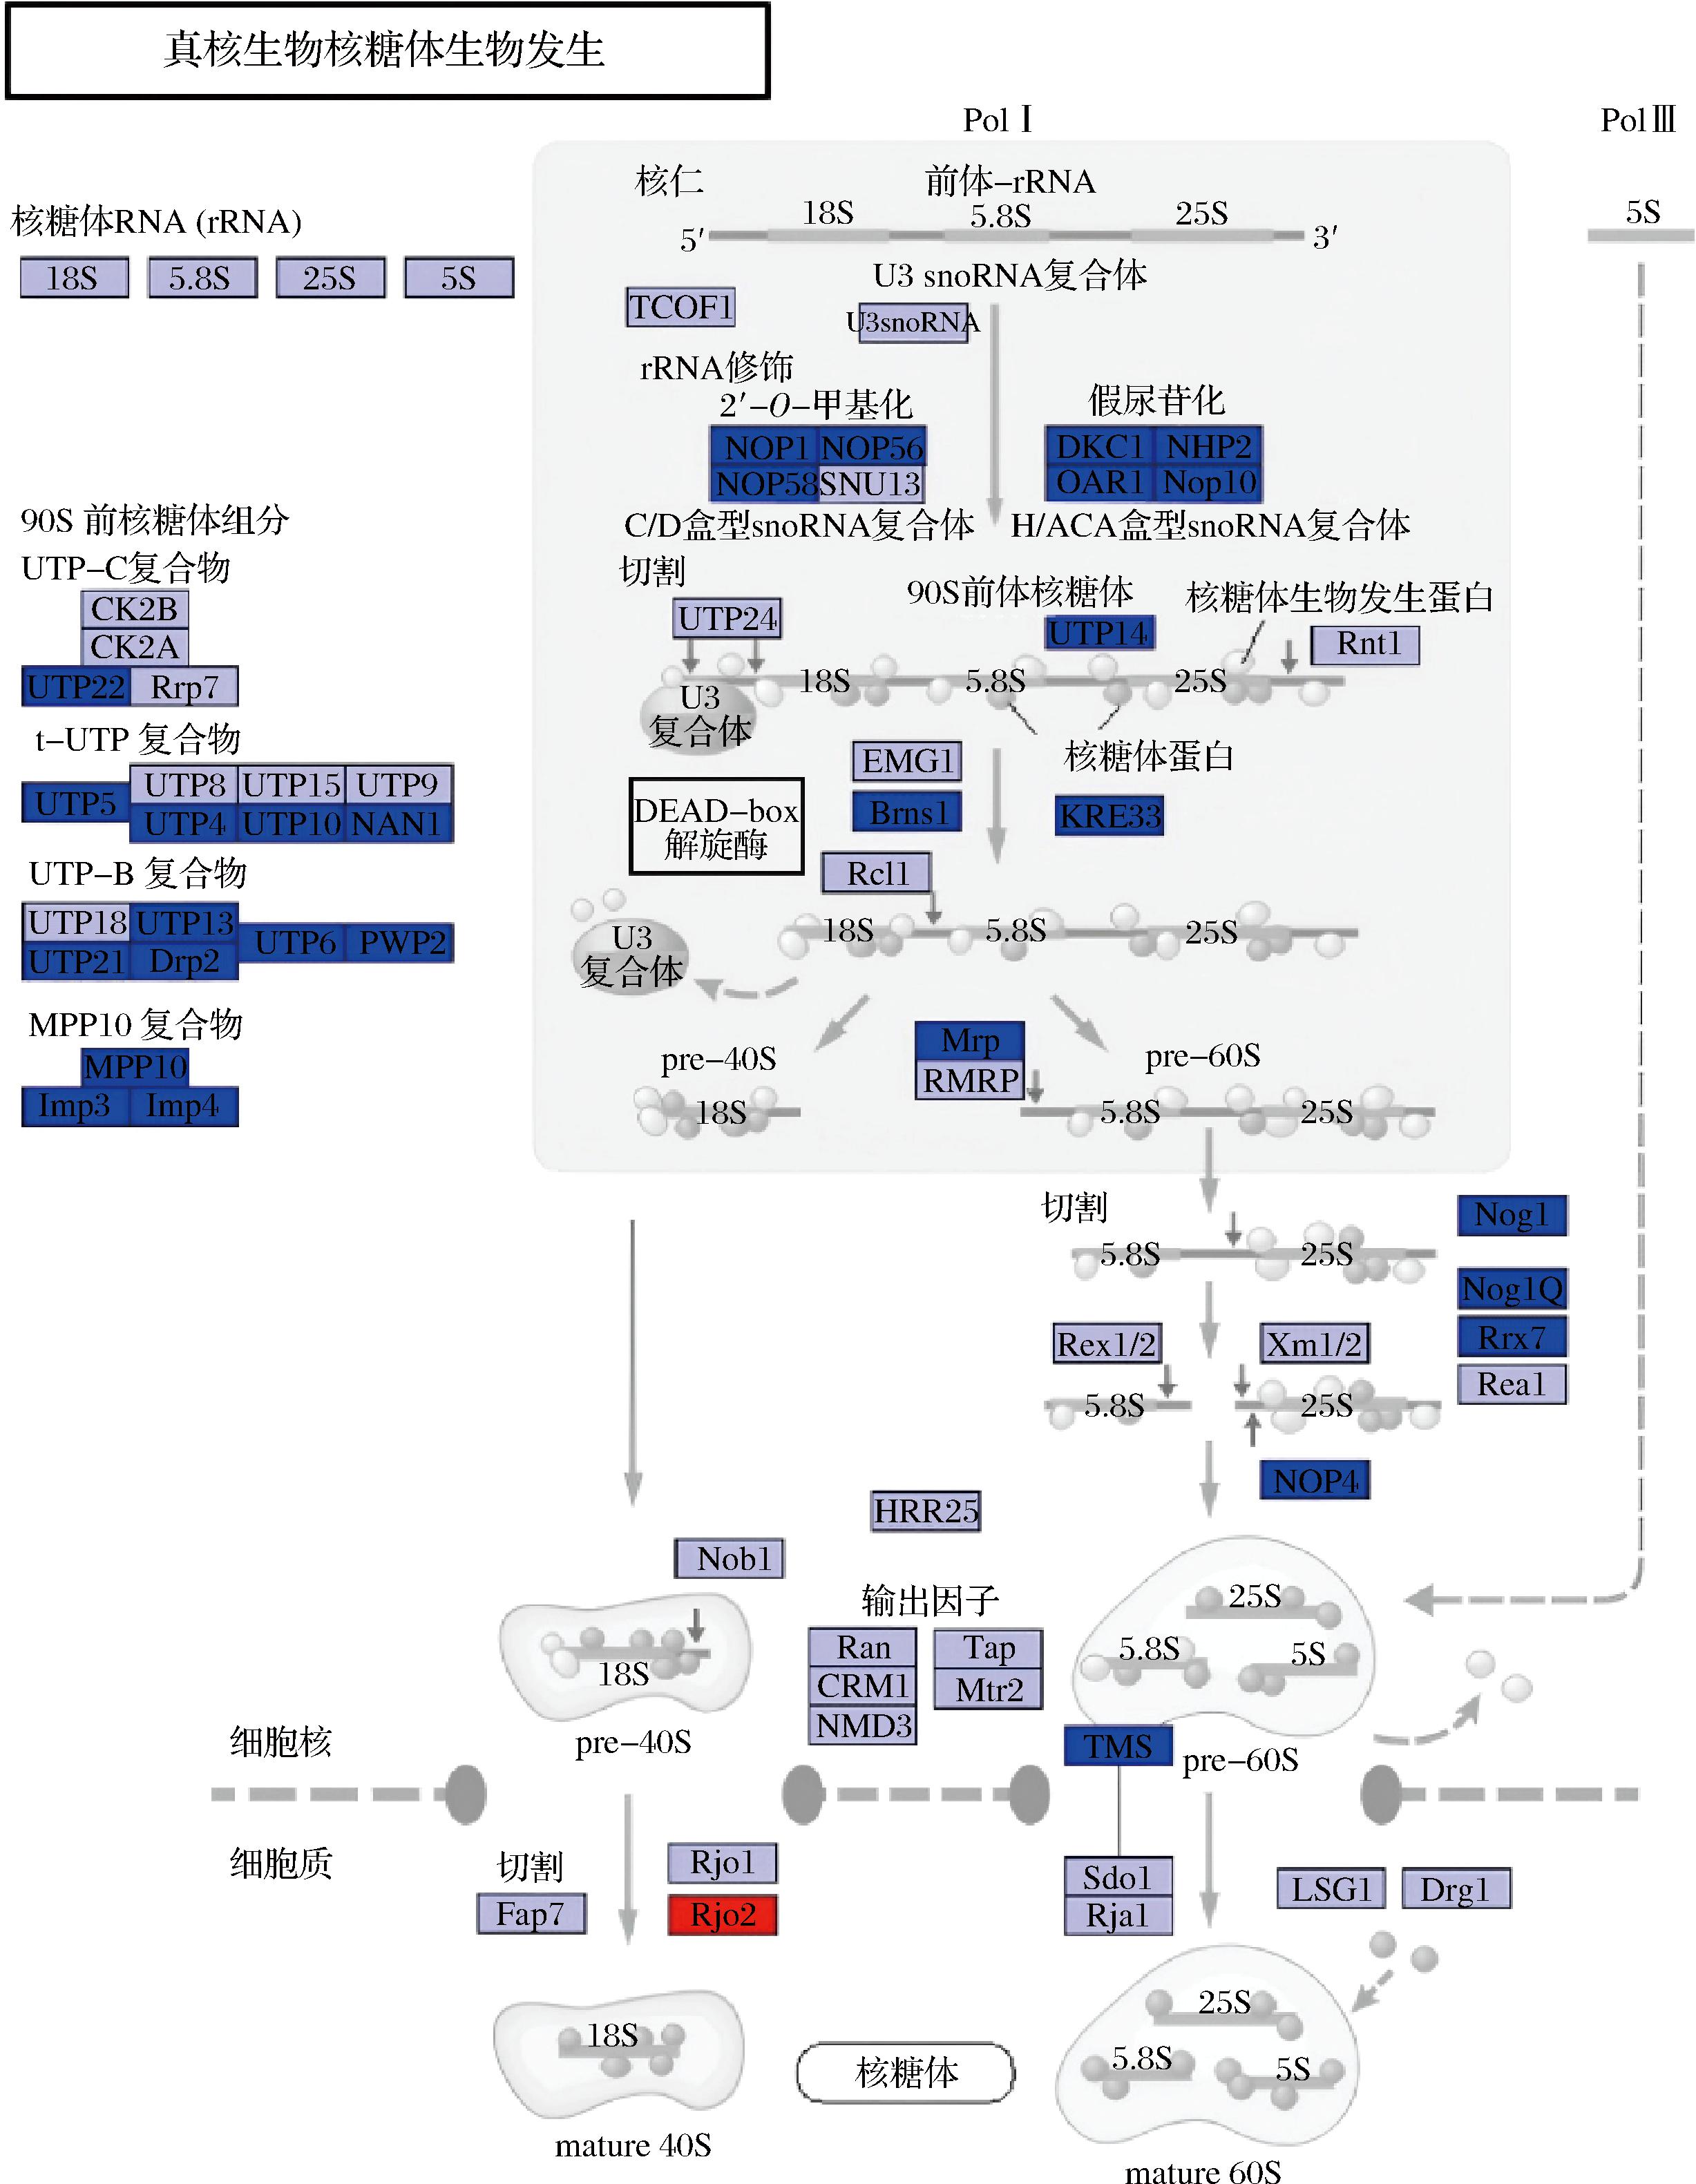
图8 真核生物核糖体生物发生信号通路差异基因代谢通路注释图
Fig.8 Differentially expressed genes annotation diagram of the eukaryotic ribosome biogenesis signaling pathway
内质网蛋白质加工通路是真核生物维持蛋白质稳态的核心通路[29]。与72 h相比,发酵144 h有35个里氏木霉差异基因显著富集在内质网中的蛋白质加工通路中(图9)。内质网驻留硫氧还蛋白、蛋白质二硫键异构酶、内质网驻留热休克蛋白等32个下调表达基因主要参与内质网中纤维素酶的折叠、修饰、质量控制及转运等核心过程。其中,糖基转移酶(糖基转移酶家族66、糖基转移酶家族79)、分子伴侣(钙联蛋白、内质网驻留热休克蛋白)、转运复合体(易位蛋白Sec62、蛋白转运蛋白Sec61α亚基)是该通路的关键执行者,这些基因普遍下调结合后期蛋白质浓度的下降,表明蛋白质在分泌途径中的加工效率可能下降,从而影响了纤维素酶的合成。
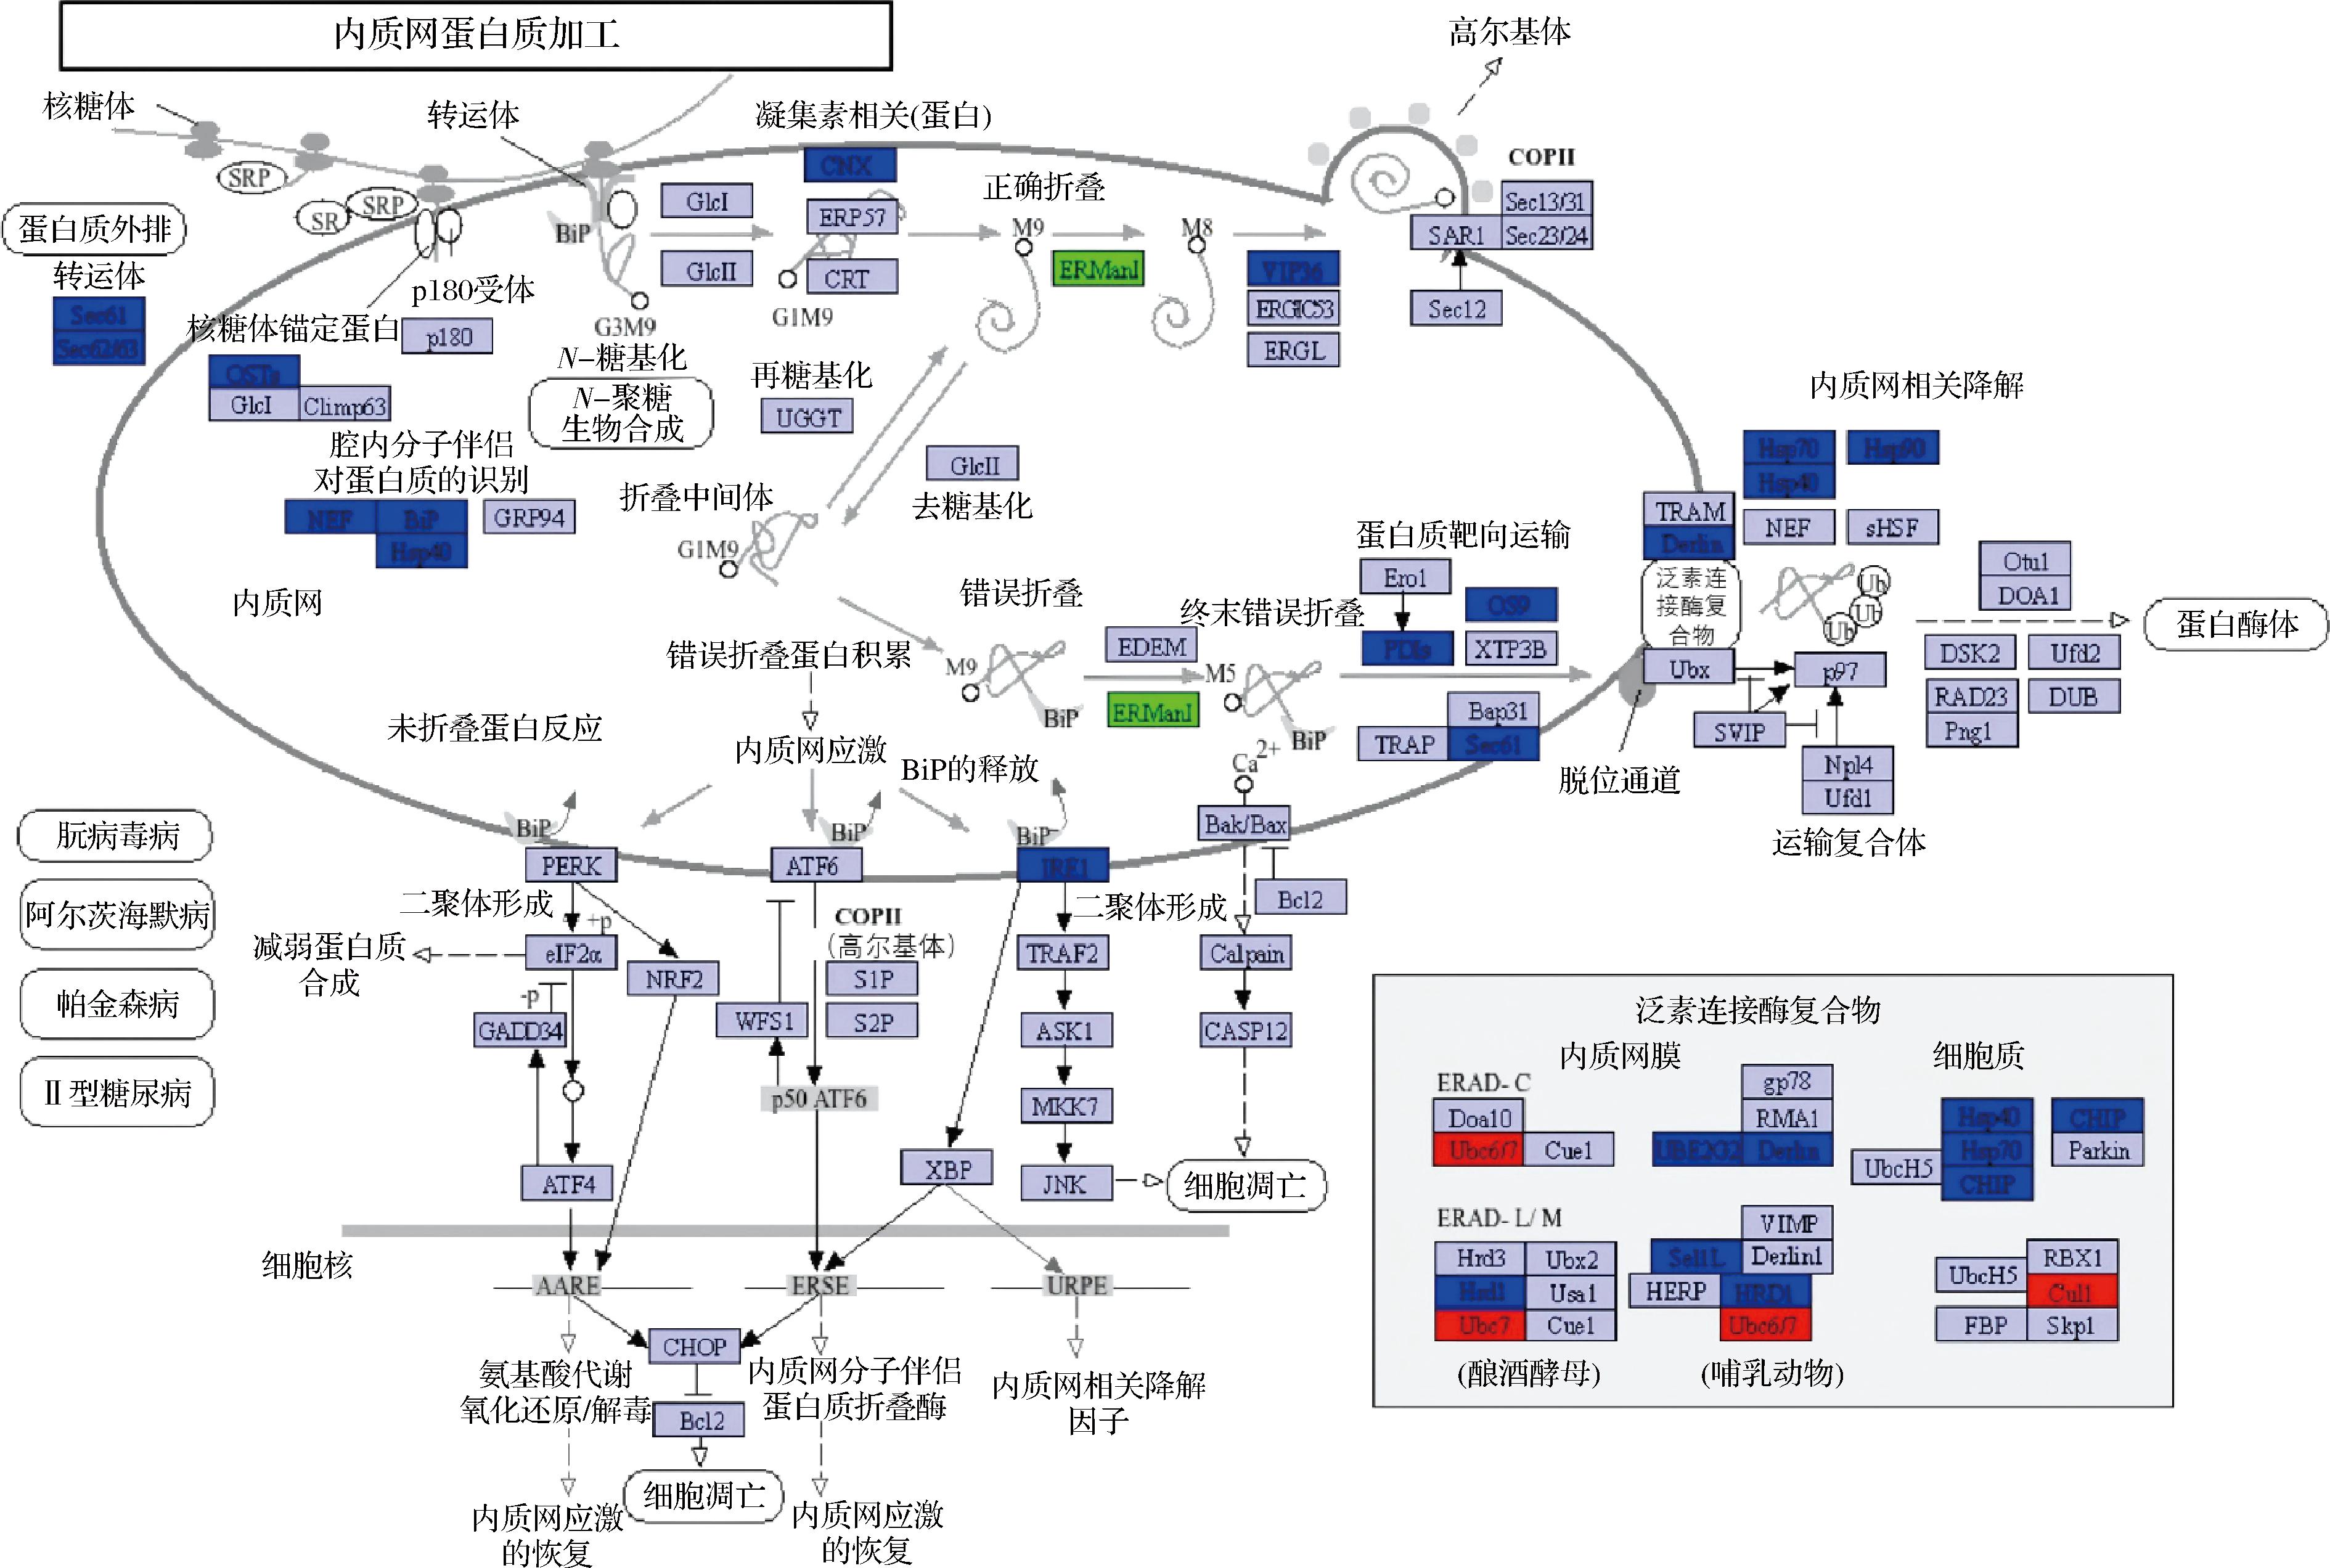
图9 内质网蛋白质加工信号通路差异基因代谢通路注释图
Fig.9 Differentially expressed genes annotation diagram of the endoplasmic reticulum protein processing signaling pathway
2.8.3 细胞应激反应
氧化应激会损伤生物大分子,导致细胞功能异常,进而影响里氏木霉的生长代谢和纤维素酶的合成分泌。高亲和力甲硫氨酸通透酶、O-乙酰高丝氨酸巯基酶、半胱氨酸β-裂合酶、半胱氨酸β-裂合酶/半胱氨酸γ-合成酶等基因的上调表达促进了半胱氨酸的合成,而半胱氨酸是谷胱甘肽的必需组成成分[30]。在谷胱甘肽代谢通路中还原型谷胱甘肽在过氧化物酶6(EC:1.11.1.27)的催化下生成氧化型谷胱甘肽(图10),这一途径的上调强化了还原型谷胱甘肽直接参与氧化应激反应的过程,有助于维持细胞内的氧化还原平衡[31]。同时,细胞通过上调谷胱甘肽还原酶(EC:1.8.1.7)的基因表达,利用NADPH将氧化型谷胱甘肽还原为还原型谷胱甘肽,维持还原型谷胱甘肽/氧化型谷胱甘肽的动态平衡,有助于细胞抗氧化能力的持续稳定来减弱后期的氧化损伤。
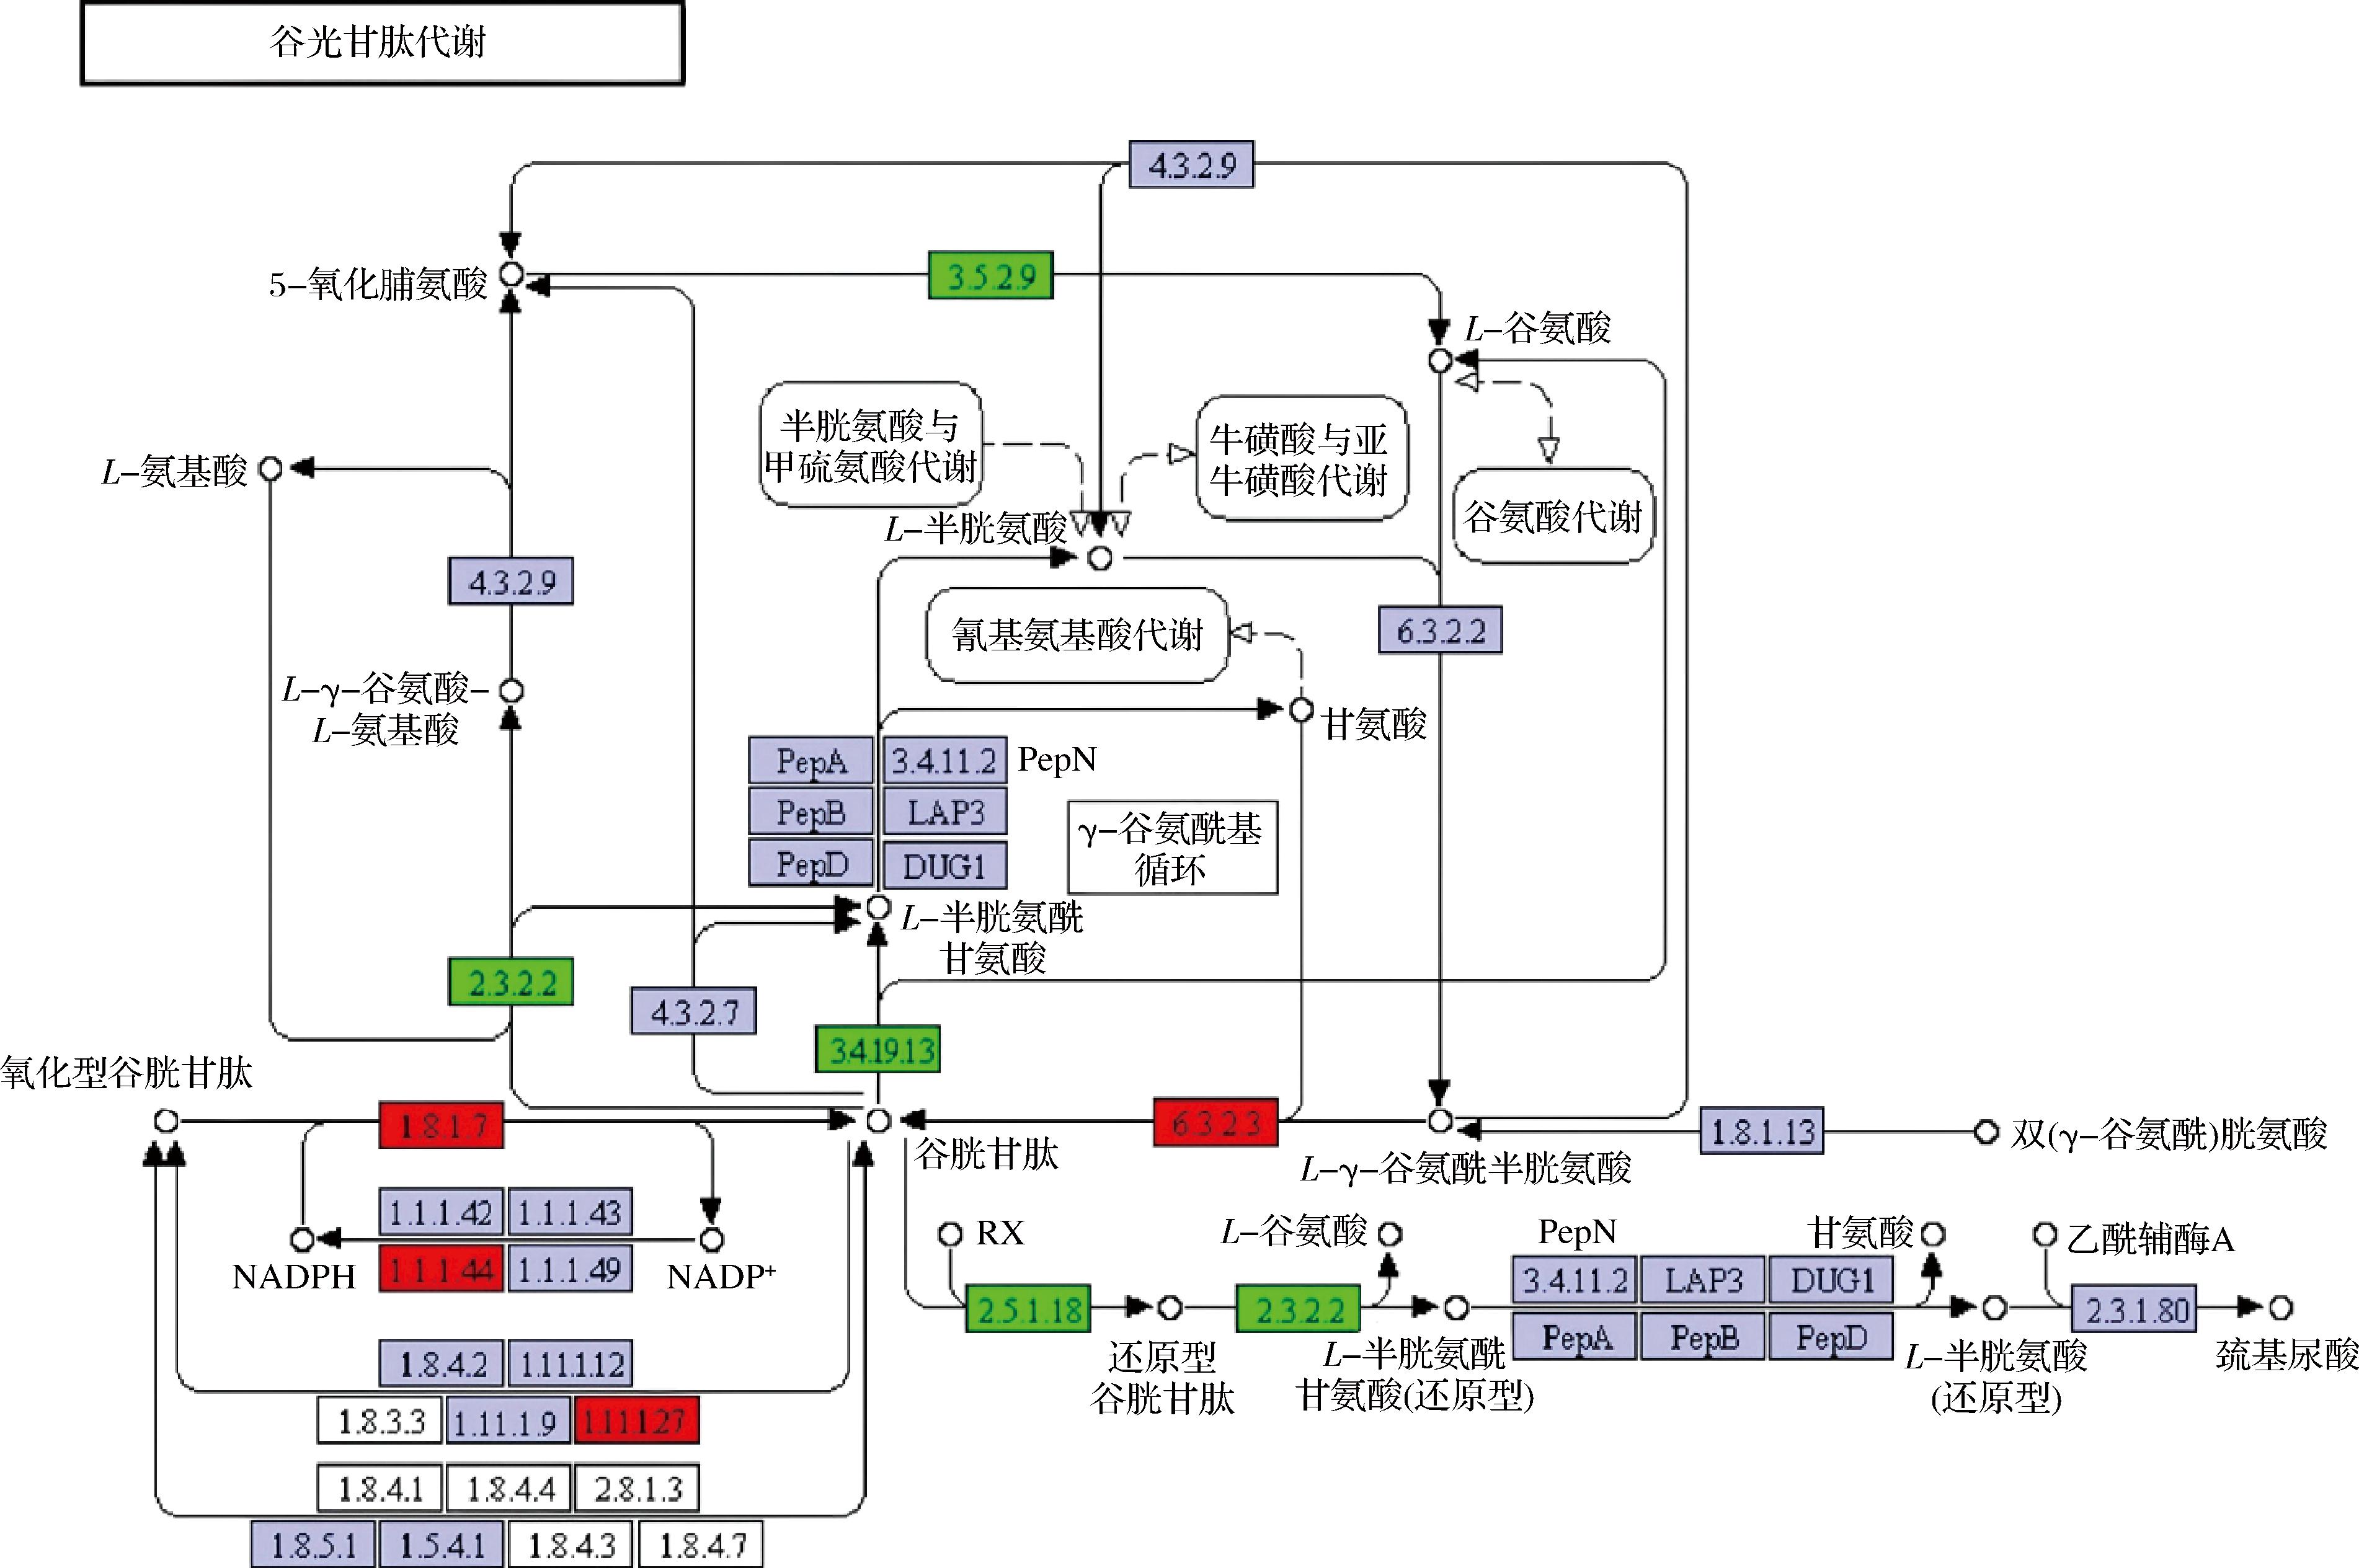
图10 谷胱甘肽代谢信号通路差异基因代谢通路注释图
Fig.10 Differentially expressed genes annotation diagram of the glutathione metabolism signaling pathway
此外,线粒体锰超氧化物歧化酶、过氧化氢酶、双功能过氧化氢酶/过氧化物酶等基因的表达上调可提高细胞抗氧化能力。这些协同上调的应激响应基因,为细胞在发酵后期生存提供了一定的保障,但也可能分流了部分用于纤维素酶合成的代谢资源。
2.9 差异基因的实时逆转录聚合酶链反应验证
为进一步验证转录组测序结果的准确性和可靠性,本研究从差异表达基因中选取了8个进行RT-qPCR验证。结果显示,纤维素酶表达基因、合成分泌基因以及氧化应激相关基因的表达趋势与转录组测序结果一致(图11),表明本研究所用转录组数据准确,结果可信。
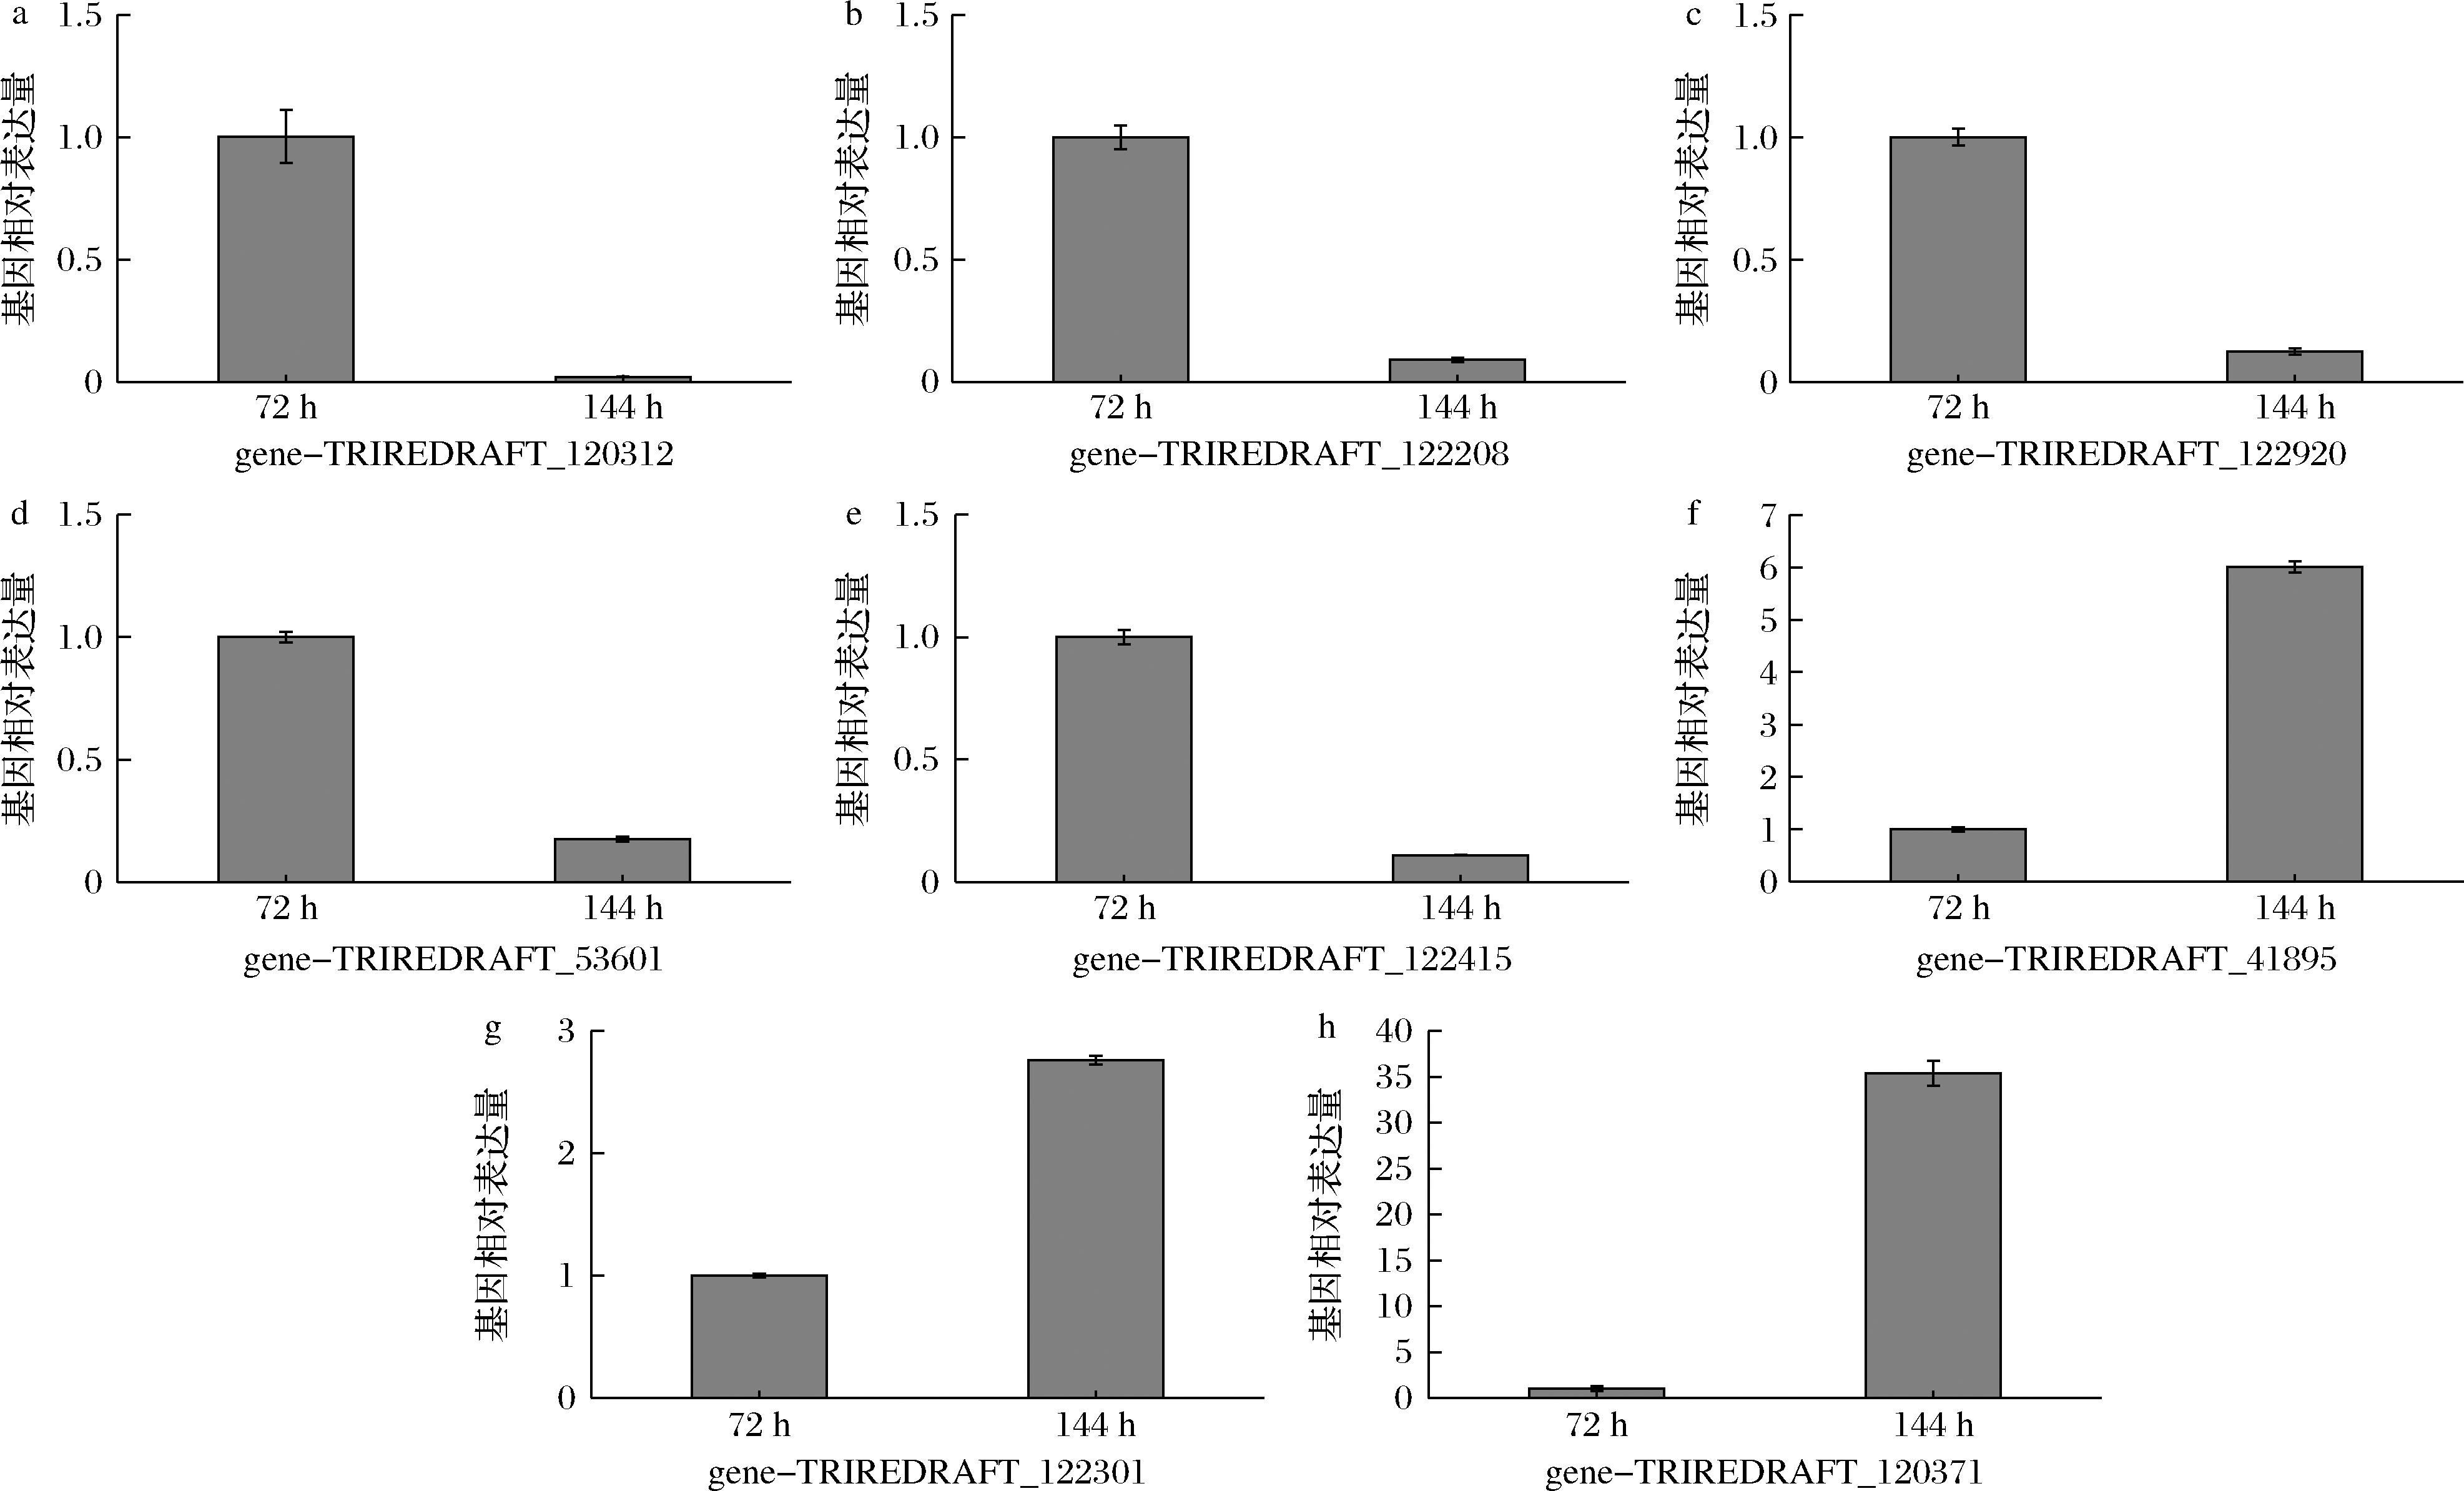
a-gene-TRIREDRAFT_120312;b-gene-TRIREDRAFT_122208;c-gene-TRIREDRAFT_122920;d-gene-TRIREDRAFT_53601;e-gene-TRIREDRAFT_122415;f-gene-TRIREDRAFT_41895;g-gene-TRIREDRAFT_122301;h-gene-TRIREDRAFT_120371
图11 RT-qPCR验证差异表达基因
Fig.11 RT-qPCR verification of differentially expressed genes
3 讨论与结论
结果表明,随发酵时间的延长,里氏木霉产纤维素酶的速率先增加后减缓,在72 h达到最高,144 h显著降低,生物量缓慢增长,发酵液黏度增大,耗糖速率降低,蛋白质含量下降,氧化损伤不断积累。转录组数据显示,发酵144 h相较于72 h,有1 554个基因下调表达,1 219个基因上调表达。GO功能富集主要涉及氧化还原酶活性、跨膜转运蛋白活性、纤维素酶活性、核仁、核质等方面。KEGG代谢途径主要涉及淀粉和蔗糖代谢、内质网蛋白质加工、真核生物核糖体生物合成、谷胱甘肽代谢等途径。
研究分析表明,纤维素酶核心编码基因(cbh1,egl1,bgl1)及其关键转录激活因子xyr1在144 h表达显著下调,直接关联于同期纤维素酶活性的下降。xyr1作为纤维素酶基因的关键激活剂,其表达下调可能是导致纤维素酶合成能力减弱的重要因素之一,这一结果与已有研究一致[32]。碳代谢相关基因的表达变化与产酶速率下降密切相关。其中糖转运蛋白的下调与发酵后期耗糖速率降低一致,说明碳源可利用性下降可能限制了能量供给[33]。而细胞分裂与结构合成相关基因的上调表明在碳源受限条件下,代谢活动更倾向于维持菌体结构完整性,可能降低了纤维素酶合成。同时,蛋白质合成与加工能力下降也影响了纤维素酶的合成。核糖体和内质网中相关基因的表达变化可以反映核糖体和内质网动态[34],发酵144 h核糖体生物合成与内质网蛋白质加工通路中蛋白质二硫键异构酶、Sec复合体、内质网驻留热休克蛋白等多个基因表达下调,这些基因的表达变化与蛋白质的折叠、糖基化修饰、质量控制及转运等过程相关联,可能影响了纤维素酶的合成分泌。此外,氧化应激响应可能间接影响纤维素酶的合成速率。发酵后期氧化损伤不断加重,在144 h与应激反应相关的基因[35-36]包括线粒体锰超氧化物歧化酶、过氧化氢酶、双功能过氧化氢酶/过氧化物酶等基因均上调表达,同时谷胱甘肽代谢通路也上调表达。这表明发酵后期细胞面临氧化应激压力。在此条件下,细胞代谢更倾向于维持氧化还原稳态和生存,从而可能削弱了纤维素酶的生物合成。这些复杂的生理反应解析了发酵后期纤维素酶含量降低的原因,分析表明通过工艺优化以及基因调控也可能在发酵后期维持前期的高产酶效率。此外,本研究主要基于发酵72 h(产酶关键期)与144 h(产酶速率显著下降期)2个时间节点进行转录组对比,虽能明确2个阶段的基因差异,但无法完整呈现全周期中基因表达的动态演变过程。其次,本研究发酵实验采用固定的培养基配方与补料方案,未考察碳氮源浓度比例、补料速率、溶氧控制策略等环境变量对实验结果的干扰,后续可在工艺优化中系统探究上述环境变量对产酶性能的影响,并通过更密集的时间点监控基因表达变化,以期通过动态调控策略延长产酶高峰期。
综上,本研究揭示了里氏木霉发酵过程中纤维素酶活性、蛋白质含量、氧化损伤等多项生化指标的变化情况,并从多维度解析了里氏木霉在发酵后期产酶效率降低的原因及发酵144 h产酶效率显著降低的转录调控特征,涉及关键酶基因表达下调、碳代谢适应性调整、蛋白质合成与加工能力减弱以及氧化应激响应激活等过程。为后续通过靶向调控xyr1、优化发酵策略或强化合成通路(如snc1、Sec复合体、蛋白质二硫键异构酶)等方式延缓里氏木霉产酶效率降低提供了理论参考与潜在靶点。
[1] Fonseca L M, Parreiras L S, Murakami M T. Rational engineering of the Trichoderma reesei RUT-C30 strain into an industrially relevant platform for cellulase production[J]. Biotechnology for Biofuels, 2020, 13(1):93.
[2] 徐晓, 程驰, 袁凯, 等. 里氏木霉产纤维素酶研究进展[J]. 中国生物工程杂志, 2021, 41(1):52-61.Xu X, Cheng C, Yuan K, et al. Research progress of cellulase production in Trichoderma reesei[J]. China Biotechnology, 2021, 41(1):52-61.
[3] 孙彦彦. 里氏木霉RutC-30产纤维素酶动力学及酶吸附效果初探[D]. 长沙: 中南林业科技大学, 2022. Sun Y Y. Kinetics analysis of cellulase production by Trichoderma reesei RutC-30 and preliminary study on the effect of enzyme adsorption[D]. Changsha: Central South University of Forestry and Technology, 2022.
[4] 张家松, 董宏标, 段亚飞, 等. 里氏木霉产纤维素酶的研究及其应用进展[J]. 南方水产科学, 2014, 10(5):99-104.Zhang J S, Dong H B, Duan Y F, et al. Research and application progress of cellulase in Trichoderma reesei[J]. South China Fisheries Science, 2014, 10(5):99-104.
[5] Singh A, Bajar S, Devi A, et al. An overview on the recent developments in fungal cellulase production and their industrial applications[J]. Bioresource Technology Reports, 2021, 14:100652.
[6] Bischof R H, Ramoni J, Seiboth B. Cellulases and beyond: The first 70years of the enzyme producer Trichoderma reesei[J]. Microbial Cell Factories, 2016, 15(1):106.
[7] 张远科, 徐鸿, 曹治, 等. 产纤维素酶细菌的筛选及其产酶优化[J]. 纤维素科学与技术, 2021, 29(3):16-26.Zhang Y K, Xu H, Cao Z, et al. Screening of cellulase-producing bacteria and optimization of enzyme production[J]. Journal of Cellulose Science and Technology, 2021, 29(3):16-26.
[8] 任璐, 胡杨, 龙旭伟. 槐糖在诱导纤维素酶表达方面的应用及其制备、分离研究进展[J]. 生物加工过程, 2024, 22(6):635-644.Ren L, Hu Y, Long X W. Progress on the application of sophorose in inducing cellulase expression and its preparation and separation[J]. Chinese Journal of Bioprocess Engineering, 2024, 22(6):635-644.
[9] 李鹏, 陈秀珍, 庄文颖. 高产纤维素酶的拟康宁木霉菌株8985固态发酵条件优化[J]. 菌物学报, 2021, 40(4):743-758.Li P, Chen X Z, Zhuang W Y. Optimization of solid state fermentation conditions for the high cellulase producing strain Trichoderma koningiopsis 8985[J]. Mycosystema, 2021, 40(4):743-758.
[10] 寇艳波. 里氏木霉纤维素酶诱导表达过程中碳源感应机制的研究[D]. 济南: 山东大学, 2015.Kou Y B. The study on carbon source sensing in cellulase induction of Trichoderma reesei[D]. Jinan: Shandong University, 2015.
[11] Li Y H, Liu C G, Bai F W, et al. Overproduction of cellulase by Trichoderma reesei RUT C30 through batch-feeding of synthesized low-cost sugar mixture[J]. Bioresource Technology, 2016, 216:503-510.
[12] 祖彩霞, 李志敏, 叶勤. 里氏木霉Trichoderma reesei产纤维素酶的发酵培养基碳氮源优化[J]. 生物加工过程, 2011, 9(4):6-10.Zu C X, Li Z M, Ye Q. Culture medium optimization for producing cellulase by Trichoderma reesei[J]. Chinese Journal of Bioprocess Engineering, 2011, 9(4):6-10.
[13] Wang G K, Wang H J, Xiong X C, et al. Mitochondria thioredoxin’s backup role in oxidative stress resistance in Trichoderma reesei[J]. Microbiological Research, 2015, 171:32-38.
[14] Li N, Zeng Y, Chen Y M, et al. Induction of cellulase production by Sr2+ in Trichoderma reesei via calcium signaling transduction[J]. Bioresources and Bioprocessing, 2022, 9(1):96.
[15] Wang J J, Chen Y M, Cong J W, et al. Metformin regulates cellulase production in Trichoderma reesei via calcium signaling and mitochondrial function[J]. Microbial Cell Factories, 2024, 23(1):314.
[16] 张飞, 白凤武, 赵心清. 丝状真菌纤维素酶合成诱导及转录调控[J]. 生物工程学报, 2016, 32(11):1481-1495.Zhang F, Bai F W, Zhao X Q. Induction and regulation of cellulase expression in filamentous fungi: A review[J]. Chinese Journal of Biotechnology, 2016, 32(11):1481-1495.
[17] Pirayre A, Duval L, Blugeon C, et al. Glucose-lactose mixture feeds in industry-like conditions: A gene regulatory network analysis on the hyperproducing Trichoderma reesei strain Rut-C30[J]. BMC Genomics, 2020, 21(1):885.
[18] Jiang X Z, Du J W, He R N, et al. Improved production of majority cellulases in Trichoderma reesei by integration of cbh1 gene from Chaetomium thermophilum[J]. Frontiers in Microbiology, 2020, 11:1633.
[19] Li Y H, Yu J Z, Zhang P, et al. Comparative transcriptome analysis of Trichoderma reesei reveals different gene regulatory networks induced by synthetic mixtures of glucose and β-disaccharide[J]. Bioresources and Bioprocessing, 2021, 8(1):57.
[20] 陈星宇, 张彦, 龚大春, 等. 里氏木霉E619产纤维素酶的发酵培养基优化和发酵动力学研究[J]. 化学与生物工程, 2025, 42(6):28-36.Chen X Y, Zhang Y, Gong D C, et al. Optimization in fermentation medium for cellulase production by Trichoderma reesei E619 and its fermentation kinetics[J]. Chemistry &Bioengineering, 2025, 42(6):28-36.
[21] 熊鹏, 张立, 张成杰, 等. 一种里氏木霉生产高活性酸性纤维素酶的发酵方法: CN112795491A[P]. 2023-03-17.Xiong P, Zhang L, Zhang C J, et al. A Fermentation method for producing high-activity acidic cellulase by Trichoderma reesei: CN112795491A[P]. 2023-03-17.
[22] 高乐, 吴信, 鲍彤彤, 等. 一种菌丝形态优化的里氏木霉菌株及其应用:中国, CN117286039A[P]. 2024-03-12.Gao L, Wu X, Bao T T, et al. A Trichoderma reesei strain with optimized mycelial morphology and its application: China, CN117286039A[P]. 2024-03-12.
[23] 吴悦豪. 丙二醛胁迫下植物乳植杆菌NJAU-01缓解氧化应激的作用机制研究[D]. 扬州: 扬州大学, 2025.Wu Y H. Mechanism of Lactiplantibacillus plantarum NJAU-01 relieving oxidative stress under malondialdehyde stress[D]. Yangzhou: Yangzhou University, 2025.
[24] Zhao Q Q, Yang Z Z, Xiao Z Y, et al. Structure-guided engineering of transcriptional activator XYR1 for inducer-free production of lignocellulolytic enzymes in Trichoderma reesei[J]. Synthetic and Systems Biotechnology, 2023, 8(4):732-740.
[25] Ji W L, Wang X L, Liu X Q, et al. Combining manipulation of integration loci and secretory pathway on expression of an Aspergillus niger glucose oxidase gene in Trichoderma reesei[J]. Microbial Cell Factories, 2023, 22(1):38.
[26] Schalamun M, Molin E M, Schmoll M. RGS4 impacts carbohydrate and siderophore metabolism in Trichoderma reesei[J]. BMC Genomics, 2023, 24(1):372.
[27] Li D D, Wang J N, Jiang Y R, et al. Quantifying functional redundancy in polysaccharide-degrading prokaryotic communities[J]. Microbiome, 2024, 12(1):120.
[28] Wu S, Tutuncuoglu B, Yan K G, et al. Diverse roles of assembly factors revealed by structures of late nuclear pre-60S ribosomes[J]. Nature, 2016, 534(7605):133-137.
[29] Schwarz D S, Blower M D. The endoplasmic reticulum: Structure, function and response to cellular signaling[J]. Cellular and Molecular Life Sciences, 2016, 73(1):79-94.
[30] Lu S C. Glutathione synthesis[J]. Biochimica et Biophysica Acta (BBA) - General Subjects, 2013, 1830(5):3143-3153.
[31] Ueno M, Sekine-Suzuki E, Nyui M, et al. Amplification of glutathione-mediated oxidative stress by catalase in an aqueous solution at hyperthermal temperatures[J]. Journal of Clinical Biochemistry and Nutrition, 2017, 60(2):93-99.
[32] Cao Y L, Zheng F L, Zhang W X, et al. Trichoderma reesei XYR1 recruits SWI/SNF to facilitate cellulase gene expression[J]. Molecular Microbiology, 2019, 112(4):1145-1162.
[33] 陈红坤. 里氏木霉产纤维素酶发酵条件研究[D]. 济南: 山东大学, 2020.Chen H K. Study on the conditions of Cellulase production by Trichoderma reesei[D]. Jinan: Shandong University, 2020.
[34] 高佳. 里氏木霉内质网蛋白折叠途径改造与异源蛋白BGLA和Lcc1的表达研究[D]. 济南: 山东大学, 2018.Gao J. Engineering of the protein folding pathway in the endoplasmic reticulum(ER) in Trichoderma reesei and study on the expression of heterologous protein BGLA and Lcc1[D]. Jinan: Shandong University, 2018.
[35] Ma W C, Nunes I, Hamish Young C S, et al. Catalase enrichment using recombinant adenovirus protects alphaTN4-1 cells from H2O2[J]. Free Radical Biology &Medicine, 2006, 40(2):335-340.
[36] Njuma O J, Davis I, Ndontsa E N, et al. Mutual synergy between catalase and peroxidase activities of the bifunctional enzyme KatG is facilitated by electron hole-hopping within the enzyme[J]. The Journal of Biological Chemistry, 2017, 292(45):18408-18421.