在肉制品加工过程中,磷酸盐作为保水剂和品质改良剂,能显著提高蛋白的持水能力,减少加工过程中的水分流失,赋予肉制品优质的食用特性与鲜嫩多汁的感官效果[1]。然而,过多摄入磷酸盐会危害消费者的身体健康,长期过量摄入则会导致体内钙磷比失衡,增加骨骼疾病的患病风险,且与慢性肾功能障碍以及心脑血管疾病的患病风险呈正相关[2]。因此,在肉制品加工体系中,探寻可替代磷酸盐,且兼具生理活性的功能性成分,以满足食品工业对清洁标签及高品质肉制品的双重需求,是当前肉制品领域研究的热点之一。
柑橘纤维(citrus fiber,CF)具有良好的保水、保油、增稠以及乳化性能,作为一种益生元,已被证明可降低患癌症、冠心病和肥胖症等的风险[3]。在肉制品中添加适量的CF,可以显著提高肉品的系水力、抗氧化性等,延长产品的保质期[4]。Wu等[5]在研究CF对磷酸盐介导的肌原纤维蛋白凝胶性质时发现,质量分数为10% CF可有效替代猪肉蛋白上40%磷酸盐的添加。Powell等[6]发现在博洛尼亚香肠中使用1.0% CF(质量分数)替代三聚磷酸钠后,香肠的理化性质和感官特征与磷酸盐组无显著差异。因此,CF可作为磷酸盐替代品应用到肉制品加工中,以提高产品的系水力、改善质地。菊粉(inulin,IN)来源广泛,具有多种生理功能,是一种优质的水溶性膳食纤维,可赋予食品更浓郁的口感和风味特性[7]。Paglarini等[8]研究指出,采用IN强化型纤维凝胶,改良博洛尼亚香肠制备工艺,可显著提高肉糜系水力,显著改善香肠的质地。Tomaschunas等[9]将IN、CF和部分大米淀粉添加到里昂香肠中,发现复合膳食纤维降低了里昂香肠中的肉腥味和脂肪含量,且2种膳食纤维复合对香肠无明显异味。同时,本课题组前期研究发现[10],IN或CF均能有效提升羊肉蛋白的系水力,添加3.0% IN时,蛋白系水力最强。然而,将IN与CF进行复配,用于替代加工肉制品中磷酸盐的研究还鲜见报道。
肌原纤维蛋白(myofibrillar protein,MP)约占肉类总蛋白的50%~60%,是肉类具有凝胶特性的重要蛋白质[11]。本文将探究3.0%(质量分数)IN协同不同质量分数的CF(0.5%、1.0%、1.5%、2.0%),对羊肉MP结构及系水力的影响,通过测定总巯基含量、表面疏水性、SDS-PAGE、二级结构、三级结构等指标,阐明复合膳食纤维对羊肉MP结构的影响,通过测定凝胶水分分布、蒸煮损失率及持水性,探究复合膳食纤维对凝胶系水力的作用机制。以期为复合膳食纤维在低磷肉制品中的应用提供新思路。
1 材料与方法
1.1 材料与仪器
羊后腿肉,黑龙江省大庆市宝禄牛羊肉店;腌制料(食盐、白砂糖、香辛料等),黑龙江省大庆市华辰超市;天然IN(92%,菊芋、菊苣根),丰宁平安高科技实业有限公司;CF(80%,柑橘皮),梅州金柚康健康科技有限公司;三聚磷酸钠、焦磷酸钠、六偏磷酸钠、溴酚蓝、NaCl、尿素等,中国大庆麦克林化学试剂有限公司;所有试剂均为分析级。
DM2700M Ren RL/TL共聚焦显微拉曼光谱仪,德国Renishaw公司;RF-6000荧光分光光度计,日本岛津公司;SPECORD 210 plus紫外分光光度计,长春市奥特实验室设备有限公司;Centrifuge 5810R高速冷冻离心机,德国Eppendorf公司;NMI 20-15低场核磁共振成像仪,苏州纽迈分析仪器股份有限公司。
1.2 实验方法
1.2.1 样品预处理
以新鲜羊腿肉为原料,经如下流程处理:首先剔除结缔组织,将其切成3 cm×3 cm×3 cm的块状;随后将肉块与冰水等辅料一同放入斩拌机中,斩拌1 min;并按照表1的配方分别添加磷酸盐、CF、IN及香辛料等成分。设置7个实验组:对照组、添加0.3%(质量分数)磷酸盐处理组以及5个IN-CF处理组。每组物料充分斩拌2 min,直至形成质地均匀、富有弹性的状态。将处理结束的羊肉糜置于4 ℃冰箱中冷藏腌制24 h,供后续实验使用。
表1 腌制羊肉糜的配方组成 单位:g
Table 1 Formula composition of marinated lamb mince
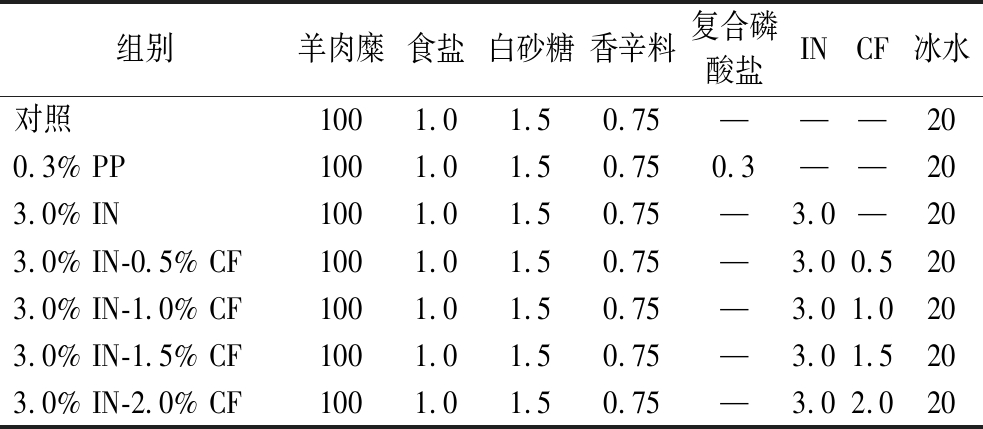
注:复合磷酸盐:三聚磷酸钠、二磷酸钠、六聚磷酸钠(2∶2∶1,质量比);0.3%(质量分数)PP:磷酸盐处理组。
组别羊肉糜食盐白砂糖香辛料复合磷酸盐INCF冰水对照1001.01.50.75———200.3% PP1001.01.50.750.3——203.0% IN1001.01.50.75—3.0—203.0% IN-0.5% CF1001.01.50.75—3.00.5203.0% IN-1.0% CF1001.01.50.75—3.01.0203.0% IN-1.5% CF1001.01.50.75—3.01.5203.0% IN-2.0% CF1001.01.50.75—3.02.020
1.2.2 肌原纤维蛋白提取
参考陶迎梅等[12]的方法提取MP。取20 g腌制好的肉样加入到匀浆机中,并加入80 mL的蛋白提取液(0.1 mol/L KCl,2 mmoL/L MgCl2,1 mmol/L EGTA,20 mmol/L K2HPO4,20 mmol/L KH2PO4,pH 7.0)在匀浆机中4 ℃匀浆(60 s),匀浆后进行离心(4 ℃,4 500 r/min,15 min)。重复上述步骤3次。沉淀物用4倍体积的洗脱液(0.1 mol/L NaCl)洗脱,均浆60 s,随后,用4层医用纱布过滤后离心(4 ℃,5 000 r/min,20 min),用0.1 mol/L盐酸调节pH值至6.25,得到MP沉淀。采用双缩脲法测定蛋白浓度。用15 moL/L 1,4-哌嗪二乙磺酸缓冲液(1,4-piperazinediethanesulfonic acid, PIPES)调整MP质量浓度为40 mg/mL。为了进一步分析,获得的MP保存在4 ℃,并在48 h内使用。
1.2.3 蛋白结构的测定
1.2.3.1 表面疏水性测定
参照Chelh等[13]的方法。将MP溶液质量浓度稀释至2 mg/mL,取1 mL样品加入200 μL 0.1%(质量分数)溴酚蓝溶液,在避光条件下室温混合15 min使其充分反应,随后以10 000 r/min的转速离心10 min。上清液经10倍稀释后,使用PIPES缓冲液作为空白对照,在595 nm波长处测量吸光值。表面疏水性的计算如公式(1)所示:
溴酚蓝结合量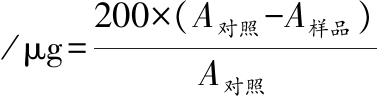
(1)
式中:A对照,对照管的吸光度值;A样品,样品管的吸光度值。
1.2.3.2 总巯基含量测定
采用曹莹莹等[14]的方法进行处理。将MP溶液稀释至5 mg/mL。将约8 mL尿素-SDS溶液[8.0 mol/L CO(NH2)2,体积分数3% SDS,0.6 mol/L NaCl,pH 7.0]加入2 mL样品溶液,在室温下间歇摇晃5 min。将上述5 mL的混合物与1 mL DNTB(1 mg/mL)溶液完全混合,在室温下反应1 h。在412 nm下检测吸光度值。总巯基含量的计算如公式(2)所示:
总巯基含量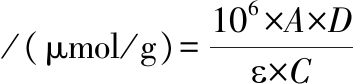
(2)
式中:A,412 nm处的吸光度;D,稀释比,即初始溶液与当前浓度的比值;C,MP质量浓度(mg/mL);ε,摩尔吸光系数,13 600 L-1cm-1。
1.2.3.3 蛋白拉曼光谱及二级结构测定
将制备的40 mg/mL蛋白的样品平铺在载玻片上测量。设置参数为:785 nm激发激光束,10次扫描,10 s曝光时间,3 600~400 cm-1光谱范围,2 cm-1分辨率。使用LabSpec 5软件对拉曼光谱曲线进行平滑和基线校正。利用PeakFit 4.12计算蛋白质二级结构的相对含量。
1.2.3.4 SDS-PAGE测定
参考Zhu等[15]的方法。调整MP溶液质量浓度至2 mg/mL,混合等体积的装载缓冲液(未还原态不加入β-巯基乙醇),沸水加热5 min。电泳凝胶由5%丙烯酰胺堆积凝胶和12%丙烯酰胺分离凝胶组成(体积分数),样品取样5 μL,标准蛋白质样品10 μL。电泳后,用考马斯亮蓝R-250染色30 min,随后用含8%冰醋酸和20%乙醇的脱色液振荡脱色过夜(体积分数)。用蛋白标记物(10 ~250 kDa)测定其分子质量。
1.2.3.5 荧光光谱测定
使用荧光分光光度计测量MP的荧光强度。MP样品需预先稀释至质量浓度0.1 mg/mL,选用光径1 cm的石英比色皿装样。激发波长设为280 nm,发射光谱扫描范围为290~460 nm,所有操作均在室温下进行。
1.2.4 热诱导凝胶的制备
将1.2.2节提取后的MP样品置于50 mL烧杯中,样品封口后放入水浴锅,以1 ℃/min升温至75 ℃(起始温度25 ℃)并保温30 min;之后立即移至冰水中冷却,再转入4 ℃冰箱静置12 h,制得凝胶。
1.2.5 蛋白凝胶系水力的测定
1.2.5.1 水分分布测定
将凝胶制成约2 cm×2 cm×1 cm的块状,用薄膜包裹后置于核磁样品管中,使用CPMG序列模式,在0.1~10 000 ms弛豫时间下测量,测量结束进行数据反演并分析处理。
1.2.5.2 蒸煮损失测定
参考曹云刚等[16]的方法,称量凝胶前样品质量,制得凝胶后,将凝胶倒扣于滤纸上,沥干蒸煮汁液,随后称量凝胶质量。蒸煮损失率按公式(3)计算:
蒸煮损失率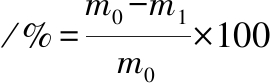
(3)
式中:m0,蒸煮前样品质量,g;m1,蒸煮后样品质量,g。
1.2.5.3 持水性测定
准确称取约4 g凝胶样品,随后用滤纸将其包裹并置于离心管中,4 ℃,5 000 r/min离心15 min,取出后用滤纸吸干表面水分,再次称重,持水性的计算如公式(4)所示:
持水性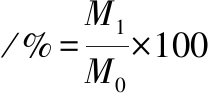
(4)
式中:M0,离心前样品质量,g;M1,离心后样品质量,g。
1.3 数据处理
每个指标在同一实验条件下重复测试3次,结果采用“平均值±标准差”形式表示。使用SPSS 26软件对实验数据进行单因素方差分析(one-way analysis of variance,ANOVA)和Duncan多重比较分析,P<0.05表示差异显著。使用Origin 2024软件进行图表绘制。
2 结果与分析
2.1 复合膳食纤维对羊肉MP结构的影响
2.1.1 复合膳食纤维对羊肉MP表面疏水性的影响
表面疏水性可以反映疏水性氨基酸在蛋白质表面的分布,这与蛋白质的功能特征密切相关[17]。如图1所示,与对照组相比,仅添加3.0% IN组具有最高的表面疏水性,这可能是因为IN中存在疏水中心的螺旋结构,该结构能诱导MP的疏水基团更多地暴露,从而增加其表面疏水性[18]。随着CF浓度的不断增大,其表面疏水性呈现出先降低,后增加的趋势。CF多糖的包埋作用,在蛋白质表面形成保护膜,有效掩盖了蛋白质表面的部分疏水位点,阻碍了其与溴酚蓝的结合[19]。同时,IN和CF共同作用于MP,位于表面的亲水基团与水分子结合,促进疏水基团隐藏在分子内部,导致表面疏水性下降[20]。2个因素共同导致疏水氨基酸被包裹在蛋白质分子中,减少了与溴酚蓝的结合位点。当添加2.0%的CF时,体系中的多糖与蛋白质争夺水分子,使蛋白质过度聚集,导致表面疏水性略有增加。磷酸盐处理组的表面疏水性明显低于对照组(P<0.05),这可能是由于蛋白质内在色氨酸被磷酸猝灭,降低了表面疏水性[21]。
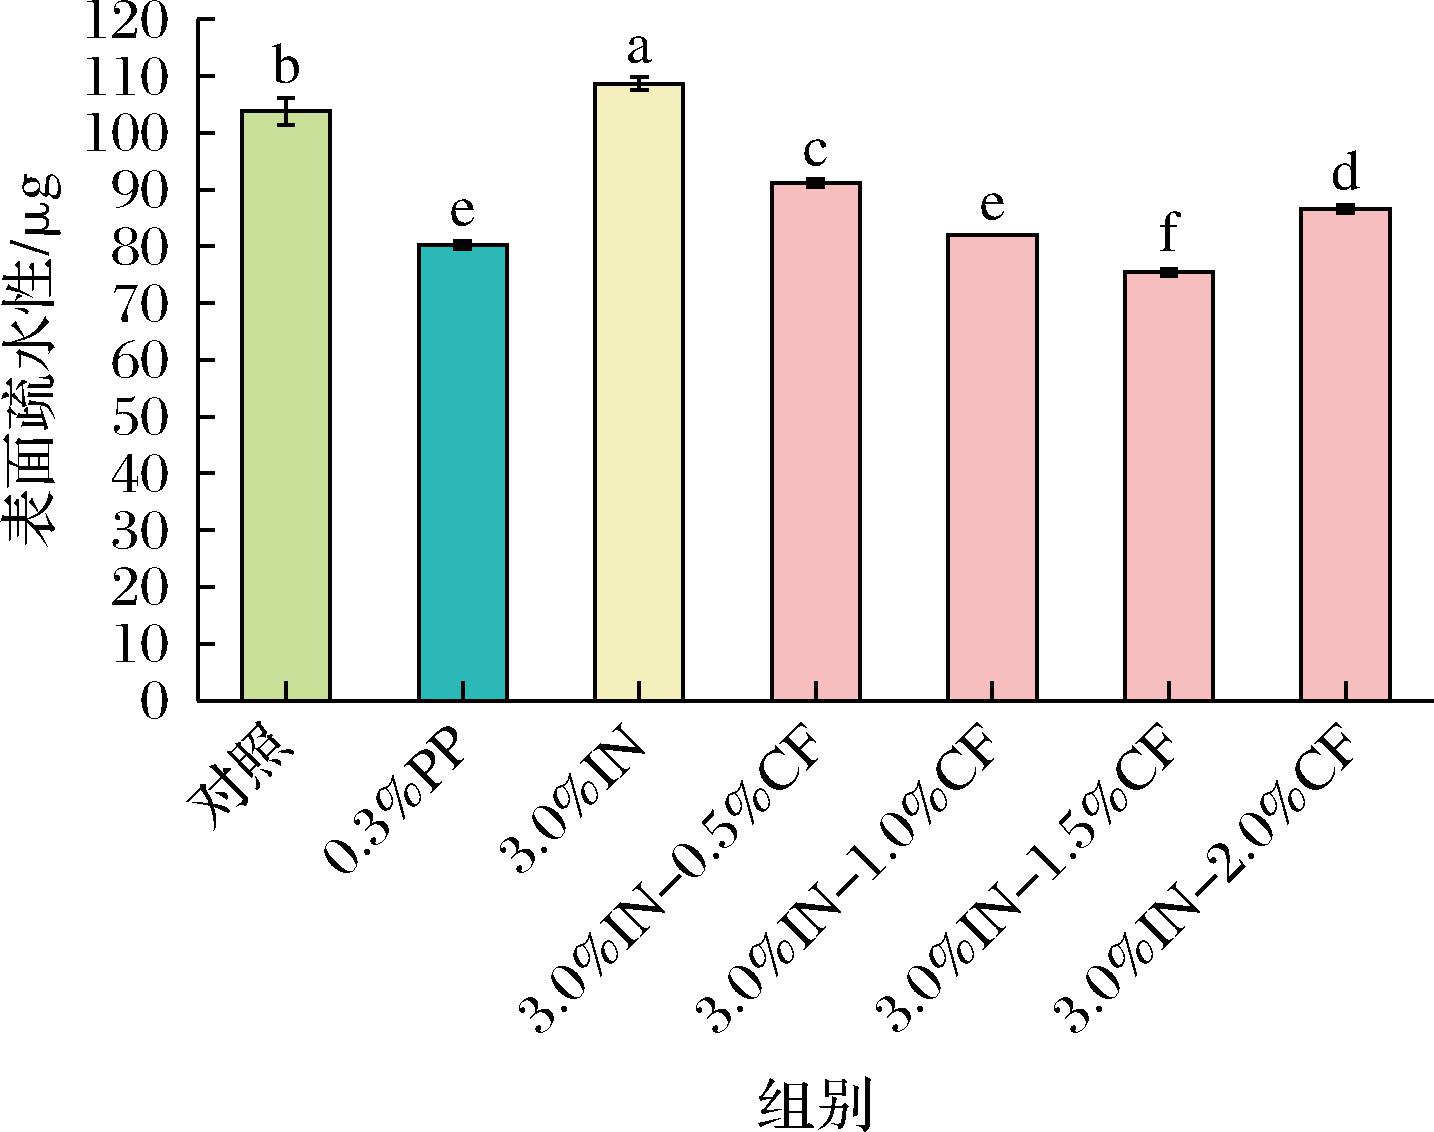
图1 CF与IN复合对蛋白表面疏水性的影响
Fig.1 Effect of CF combined with IN on hydrophobicity on the protein surface
注:不同字母代表组间具有显著性差异(P<0.05)(下同)。
2.1.2 复合膳食纤维对羊肉MP巯基的影响
巯基是MP中最具反应活性的功能性基团,对稳定MP的空间结构至关重要,总巯基包括活性巯基和隐藏在分子内部的巯基[22]。如图2所示,相比于对照组,加入质量分数0.3%磷酸盐使得蛋白结构展开,部分二硫键断裂使巯基暴露,总巯基含量增加[23]。添加膳食纤维显著增加了MP的总巯基含量(P<0.05),仅添加IN处理组的总巯基含量最大,比对照组增加了11.75%。造成这种现象的原因是因为蛋白表面的疏水基团和巯基等活性基团大多分布在肌球蛋白头上,IN可以促进肌球蛋白头部结构的展开,引起内部基团暴露[24]。这也解释了前文添加IN后,MP表面疏水性增加的原因。随着CF添加量的增加,总巯基含量呈现先下降,后上升的趋势。这是因为CF是一种阴离子多糖,阴离子多糖通过强静电相互作用包裹在MP分子周围,可能对活性基团产生掩蔽效应[19]。也有可能是因为CF在吸水和膨胀后,与蛋白质物理缠绕和掩埋,嵌入到MP分子的内部,从而抑制了蛋白质的展开,并减少巯基的暴露[17]。而添加2.0% CF时,MP巯基的含量略有增加。造成这一现象的原因可能是过多添加CF破坏了蛋白质三维结构,少量巯基暴露,导致巯基出现略增加的现象。
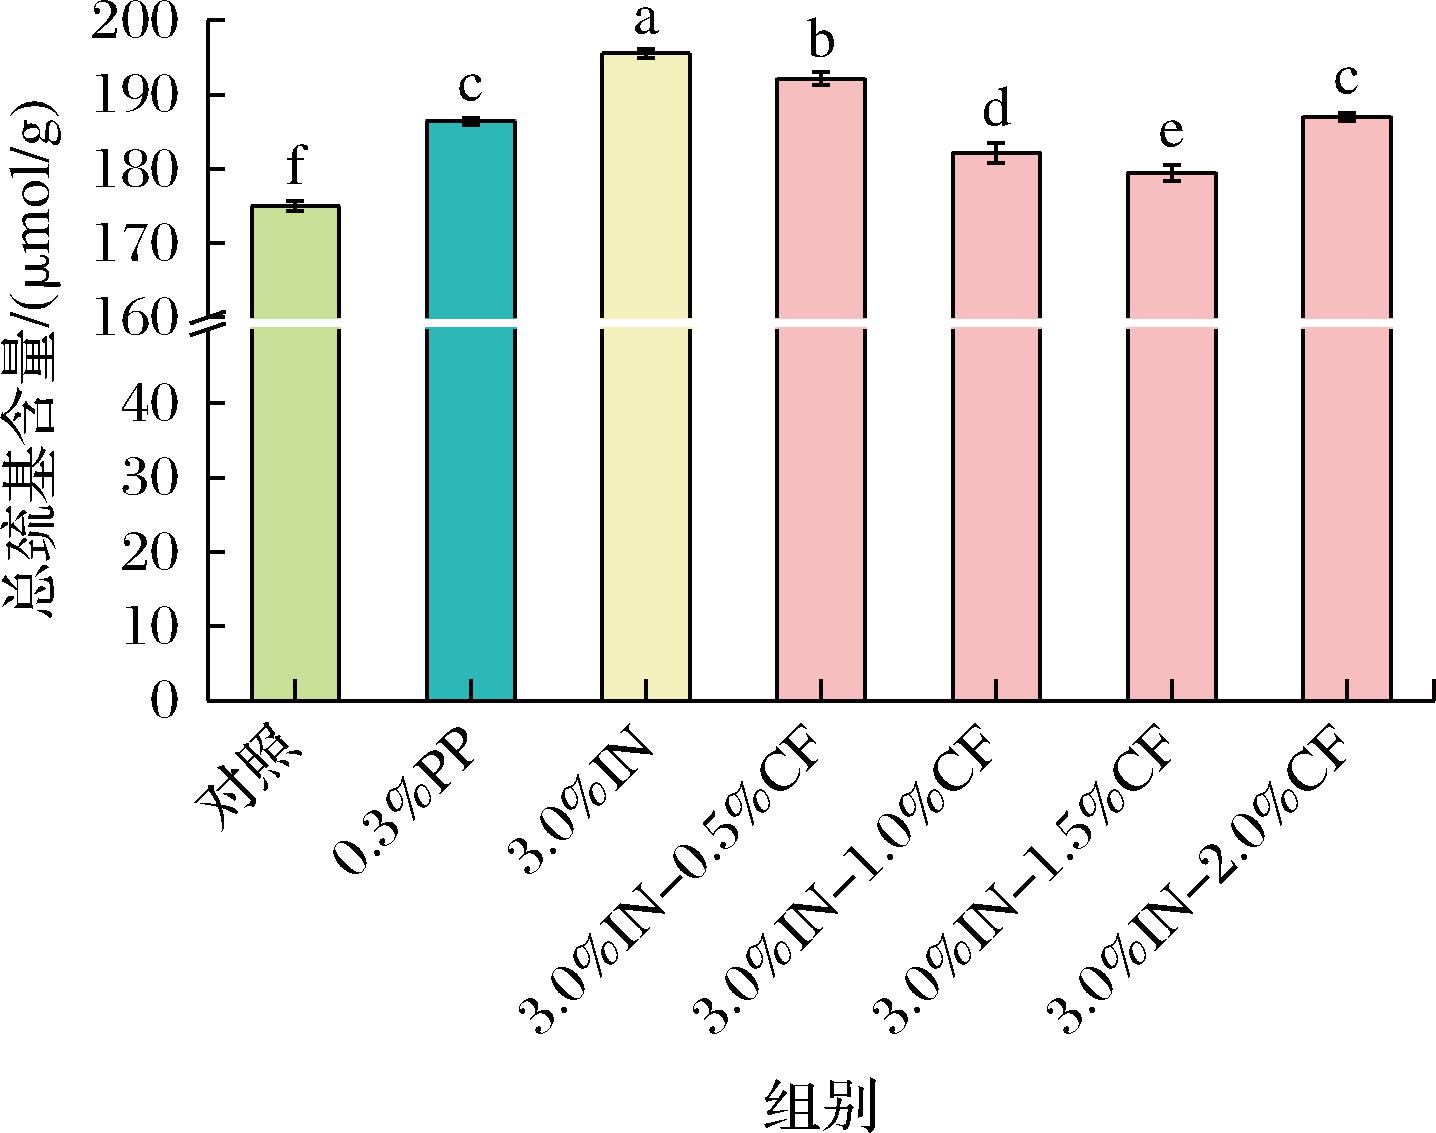
图2 CF与IN复合对MP总巯基含量的影响
Fig.2 Effect of CF combined with IN on sulfhydryl content of MP
2.1.3 复合膳食纤维对羊肉MP二级结构的影响
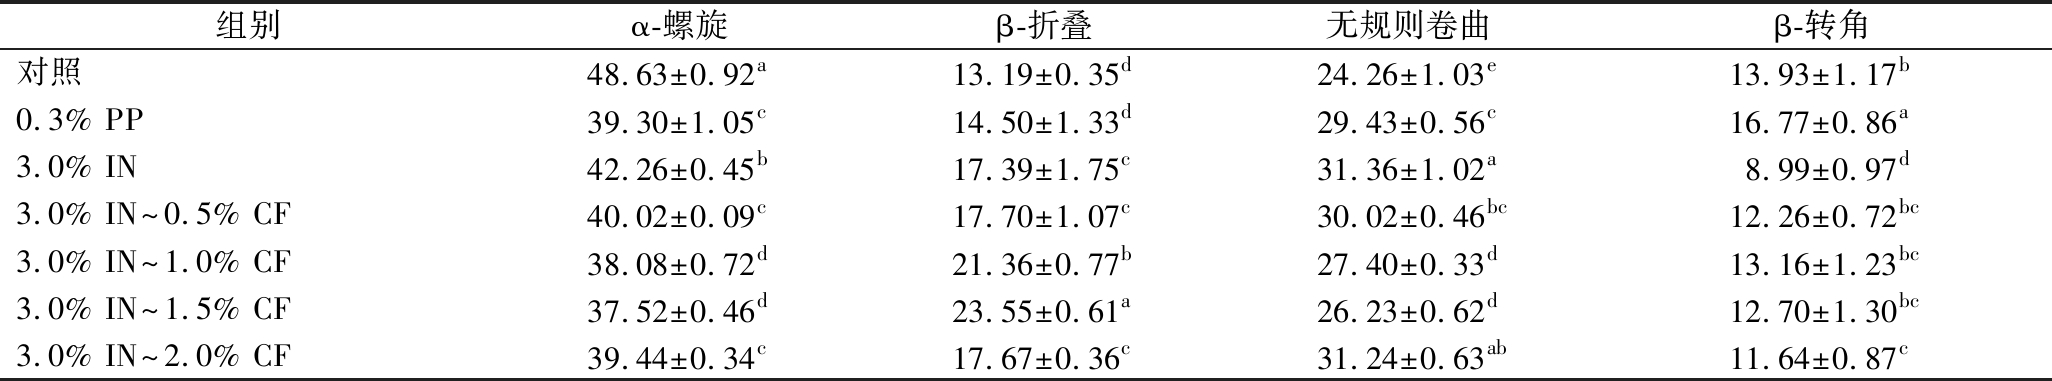
采用拉曼光谱测定了添加磷酸盐和膳食纤维(IN和CF)后MP的分子构象,以分析复合体系中蛋白质二级结构的变化。图3为不同处理后MP的特征吸收带,酰胺I带(1 700~1 600 cm-1)包含丰富的二级结构信息,波长为1 640~1 600、1 650~1 640、1 660~1 650 cm-1和1 700~1 660 cm-1的光谱带分别归属于β-折叠、无规则卷曲、α-螺旋和β-转角[25]。通过计算酰胺I带内不同谱带的拉曼曲线的峰面积,得出蛋白质4种二级结构的相对含量。如表2所示,与对照组相比,3.0% IN组的α-螺旋和β-折叠含量显著下降,无规则卷曲含量显著增加(P<0.05)。这可能是由于IN作为多糖,有助于蛋白质的二级结构的展开,促使蛋白质中有序结构变成无序结构,增加蛋白质三维空间结构。无规则卷曲含量高标志着蛋白质空间结构的展开,产生更多的水结合位点,有利于提高保水率[10]。CF(0.5%~2.0%)的加入,使MP蛋白结构发生了显著变化(P<0.05),α-螺旋呈先下降后增加的趋势,β-折叠呈先增加后减少的趋势。这可能是因为少量CF的加入促进了MP二级结构的解旋,α-螺旋结构展开,分子链的部分拉伸促进MP结构从α-螺旋结构到β-折叠结构转变[26]。β-折叠又是二级结构中稳定性较高的类型之一,因此CF与IN共同作用有助于MP稳定性的提高。当CF添加量达到2.0%时,α-螺旋含量显著升高,β-折叠含量显著降低(P<0.05)。这可能是过多的CF会过度吸收系统的水分,导致其与蛋白质分子争夺水分,影响α-螺旋结构的展开,从而影响后续凝胶网络结构的形成[27]。
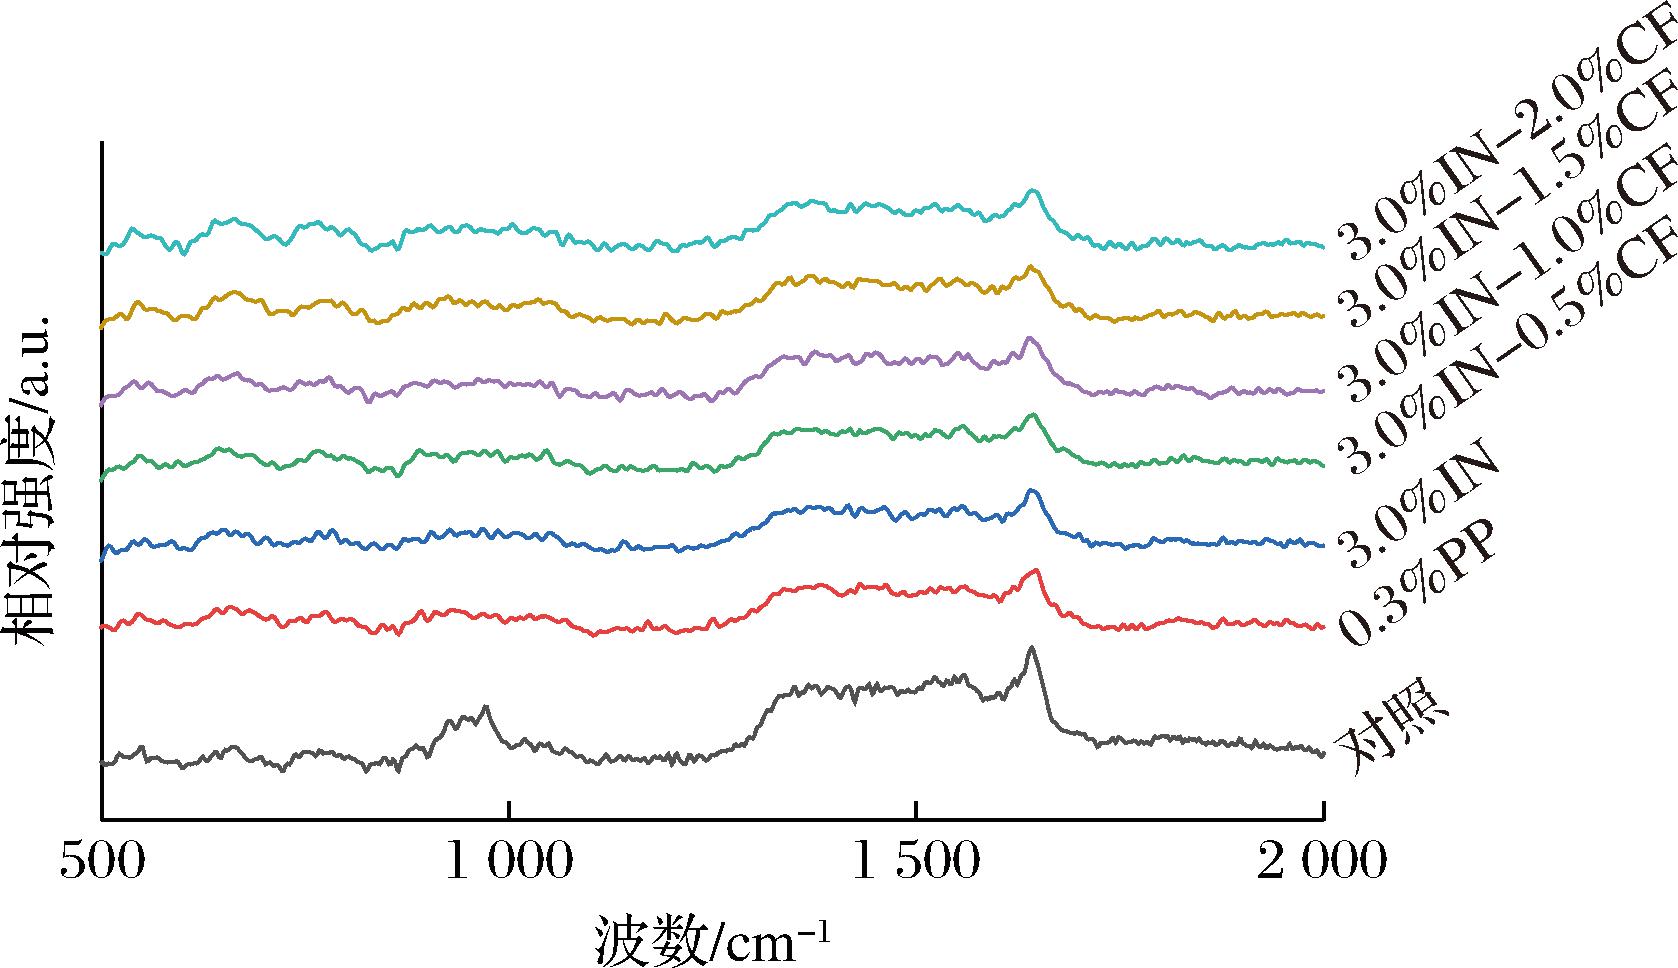
图3 CF与IN复合对MP拉曼光谱的影响
Fig.3 Effect of CF combined with IN on Raman spectra of MP
表2 不同CF与IN复合对MP的二级结构的影响
Table 2 Effect of different CF combined with IN on the secondary structure of MP
注:表中同列不同小写字母表示差异显著(P<0.05)。
组别α-螺旋β-折叠无规则卷曲β-转角对照48.63±0.92a13.19±0.35d24.26±1.03e13.93±1.17b0.3% PP39.30±1.05c14.50±1.33d29.43±0.56c16.77±0.86a3.0% IN42.26±0.45b17.39±1.75c31.36±1.02a8.99±0.97d3.0% IN~0.5% CF40.02±0.09c17.70±1.07c30.02±0.46bc12.26±0.72bc3.0% IN~1.0% CF38.08±0.72d21.36±0.77b27.40±0.33d13.16±1.23bc3.0% IN~1.5% CF37.52±0.46d23.55±0.61a26.23±0.62d12.70±1.30bc3.0% IN~2.0% CF39.44±0.34c17.67±0.36c31.24±0.63ab11.64±0.87c
2.1.4 复合膳食纤维对蛋白SDS-PAGE的影响
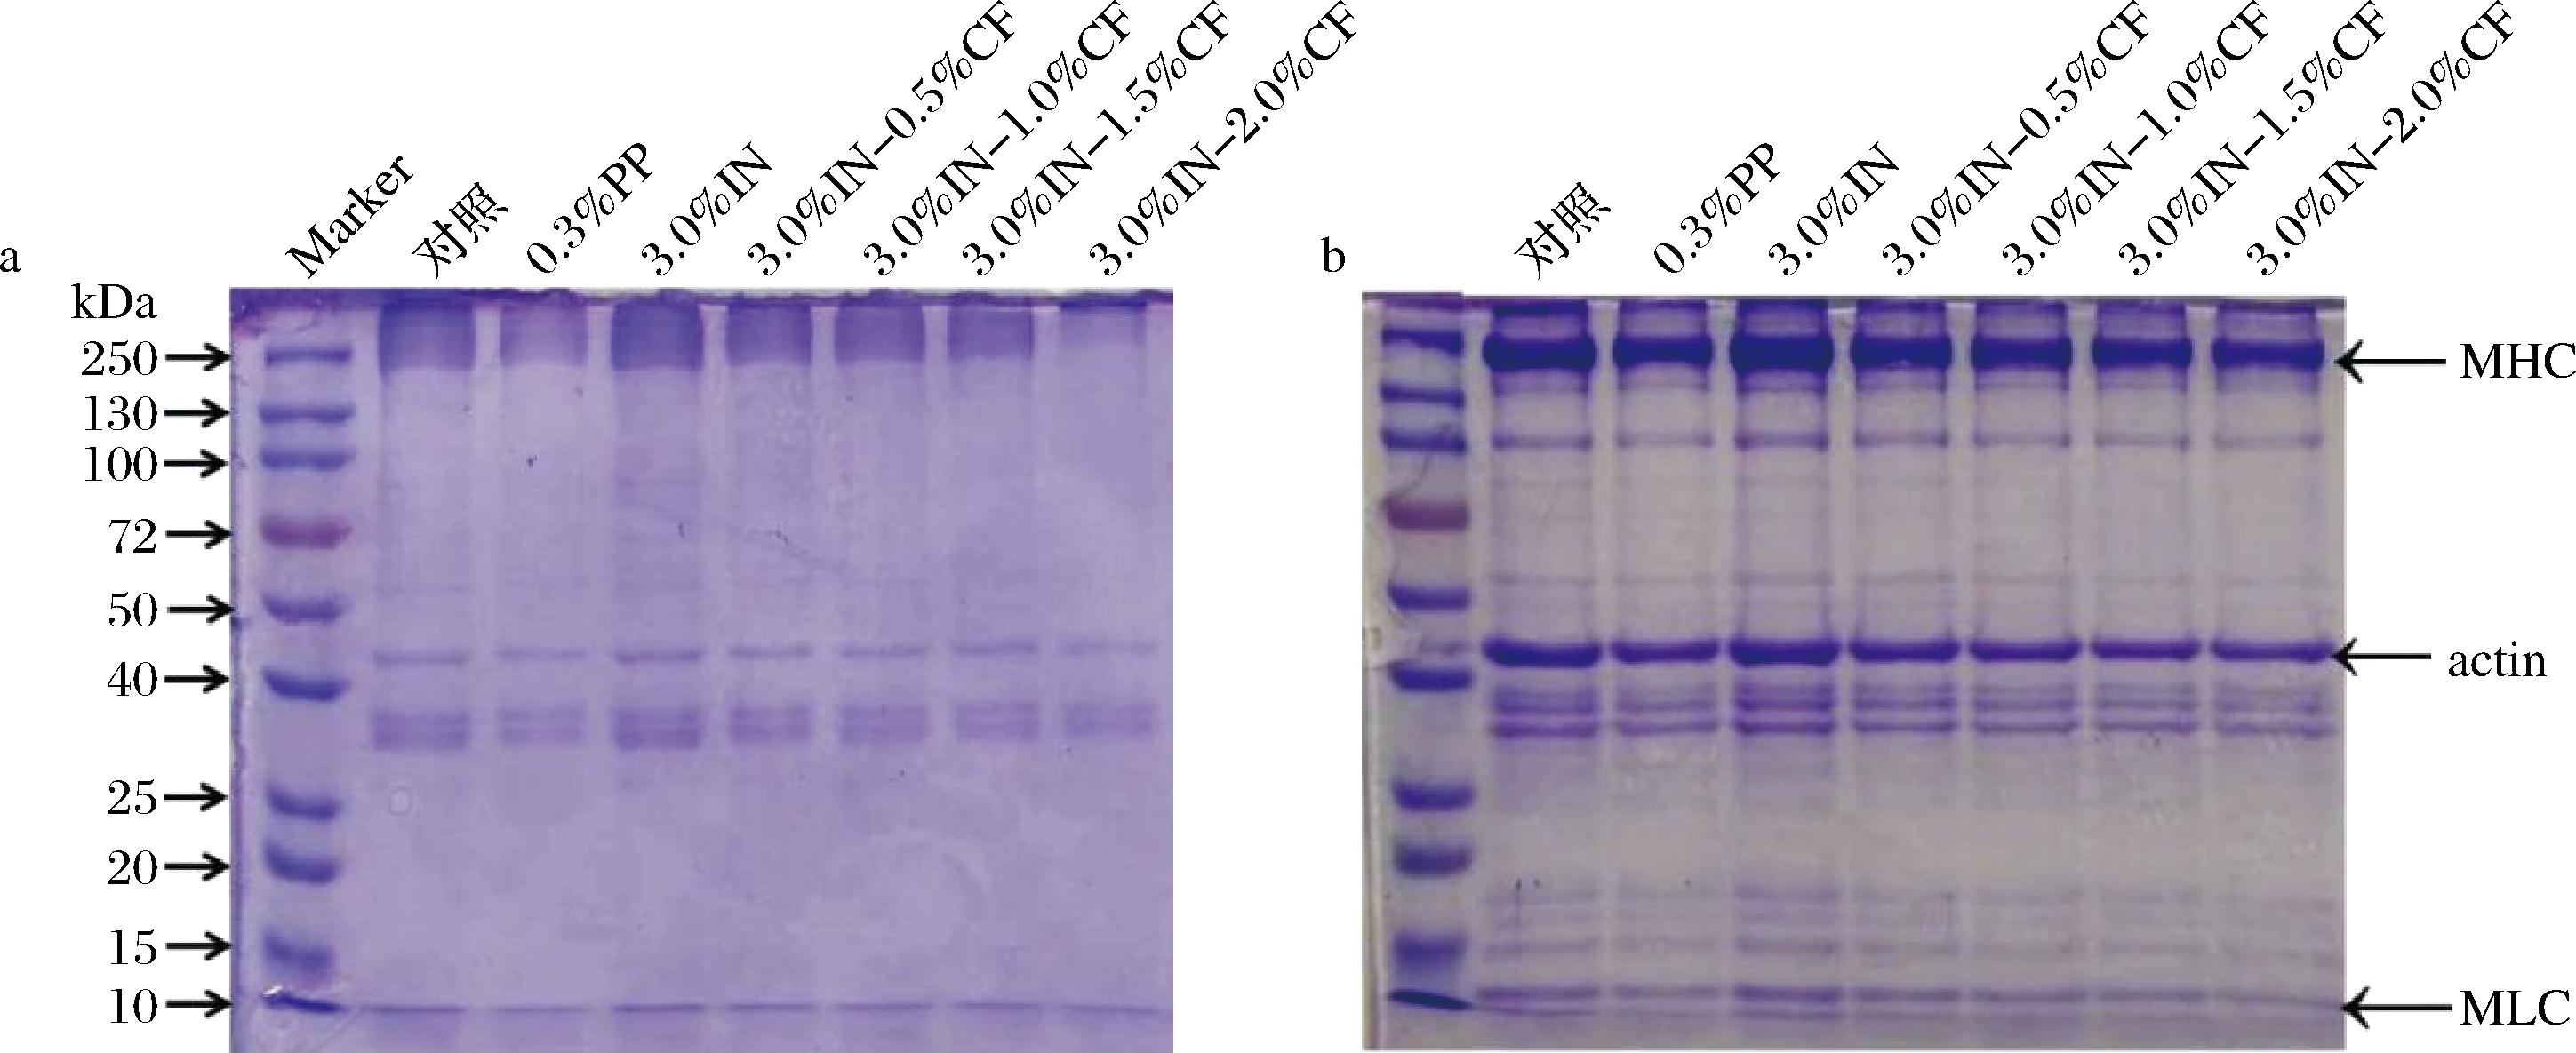
采用SDS-PAGE方法分析了IN和CF在还原条件下和非还原条件下对MP交联聚集的影响。MP是一种复合蛋白,其条带如下:肌球蛋白重链(myosin heavy chain,MHC,约250 kDa)、肌动蛋白(actin,40~50 kDa)和肌球蛋白轻链(myosin light chain, MLC,10~15 kDa)。图4-a中,相比于对照组,磷酸盐处理组与IN协同CF处理组均未出现新条带,表明添加磷酸盐或膳食纤维并未影响蛋白质的分子质量。添加IN及CF后,MHC条带明显变浅,IN协同CF促进了MP分子间的二硫键交联。随着CF添加量的增加,各条带逐渐变浅,说明蛋白的交联度逐渐增加。当CF添加量为2.0%时,MHC的含量最低,蛋白交联度最强,同时,凝胶条带顶部出现大分子聚合物。加入β-巯基乙醇后,所有条带颜色加深,是因为二硫键断裂,蛋白空间结构展开,隐藏在蛋白质折叠结构中的疏水基团、色氨酸等染色剂的结合位点暴露,与染色剂结合量增加,故条带更深。与图4-a相比,图4-b中的MHC和actin条带含量明显增强,表明复合膳食纤维的添加较大程度地诱导了MHC和actin分别与其他蛋白发生二硫键交联,而受到一定的损失,且这种损失随着CF添加量的增加而增大,导致大分子聚合物含量增加,未能进入电泳条带中,使条带颜色逐渐变浅。如图4-b所示,在还原条件下,条带聚合物通过β-巯基乙醇的加入而分离,这表明蛋白质的聚集现象大多是由二硫键的交联引起的。相比于3.0% IN处理组,加入CF后,条带变浅,说明CF诱导了非二硫键的交联,形成大分子蛋白,如酪氨酸与酪氨酸反应生成二聚酪氨酸[28]。且随着CF添加量的增加,条带逐渐变浅,说明除二硫键外的交联度逐渐增加。在图4-a和图4-b中,发现质量分数0.3%磷酸盐处理组条带与3.0% IN-1.5% CF组条带颜色没有显著差异,添加3.0% IN协同1.5% CF对MP可能产生与磷酸盐相类似的效果。
a-无β-巯基乙醇的电泳图;b-含β-巯基乙醇的电泳图
图4 CF与IN复合对蛋白SDS-PAGE电泳条带的影响
Fig.4 Effects of CF combined with IN on SDS-PAGE profiles of protein
2.1.5 复合膳食纤维对羊肉MP固有荧光光谱的影响
蛋白质内源荧光团(尤其是色氨酸残基)对其微环境变化具有高度响应性。当色氨酸所处微环境发生改变时,会导致荧光信号发生猝灭或增强效应,这一现象直接反映了蛋白质分子构象的重排过程[29]。如图5所示,3.0% IN组的荧光强度最大,IN促进了MP色氨酸残基的暴露。随着CF的添加量的增加,促进MP部分或完全折叠,防止色氨酸残留侧链过度暴露于水或极性环境,引起内源性色氨酸荧光强度降低。IN与CF共同作用于MP,以共价或非共价结合来掩盖MP的荧光强度,同时稳定蛋白质的三级结构。当CF添加量达到2.0%时,色氨酸荧光强度略增高,这可能是由于CF使MP过度聚集,引起内源性色氨酸侧链暴露。
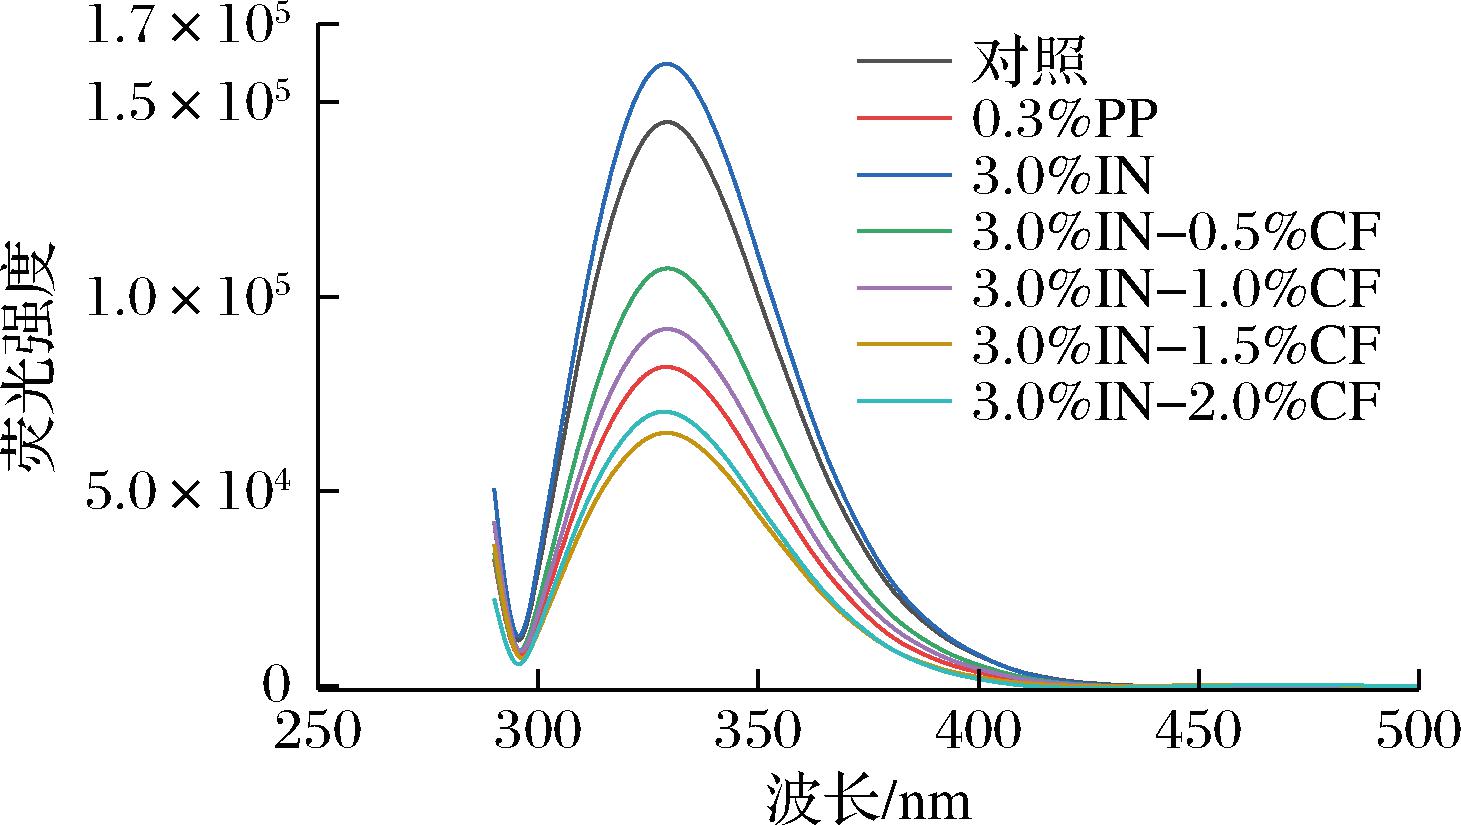
图5 CF与IN复合对MP荧光光谱的影响
Fig.5 Effect of CF combined with IN on the fluorescence spectra of MP
2.2 复合膳食纤维对羊肉MP凝胶系水力的影响
2.2.1 复合膳食纤维对羊肉MP凝胶水分分布的影响
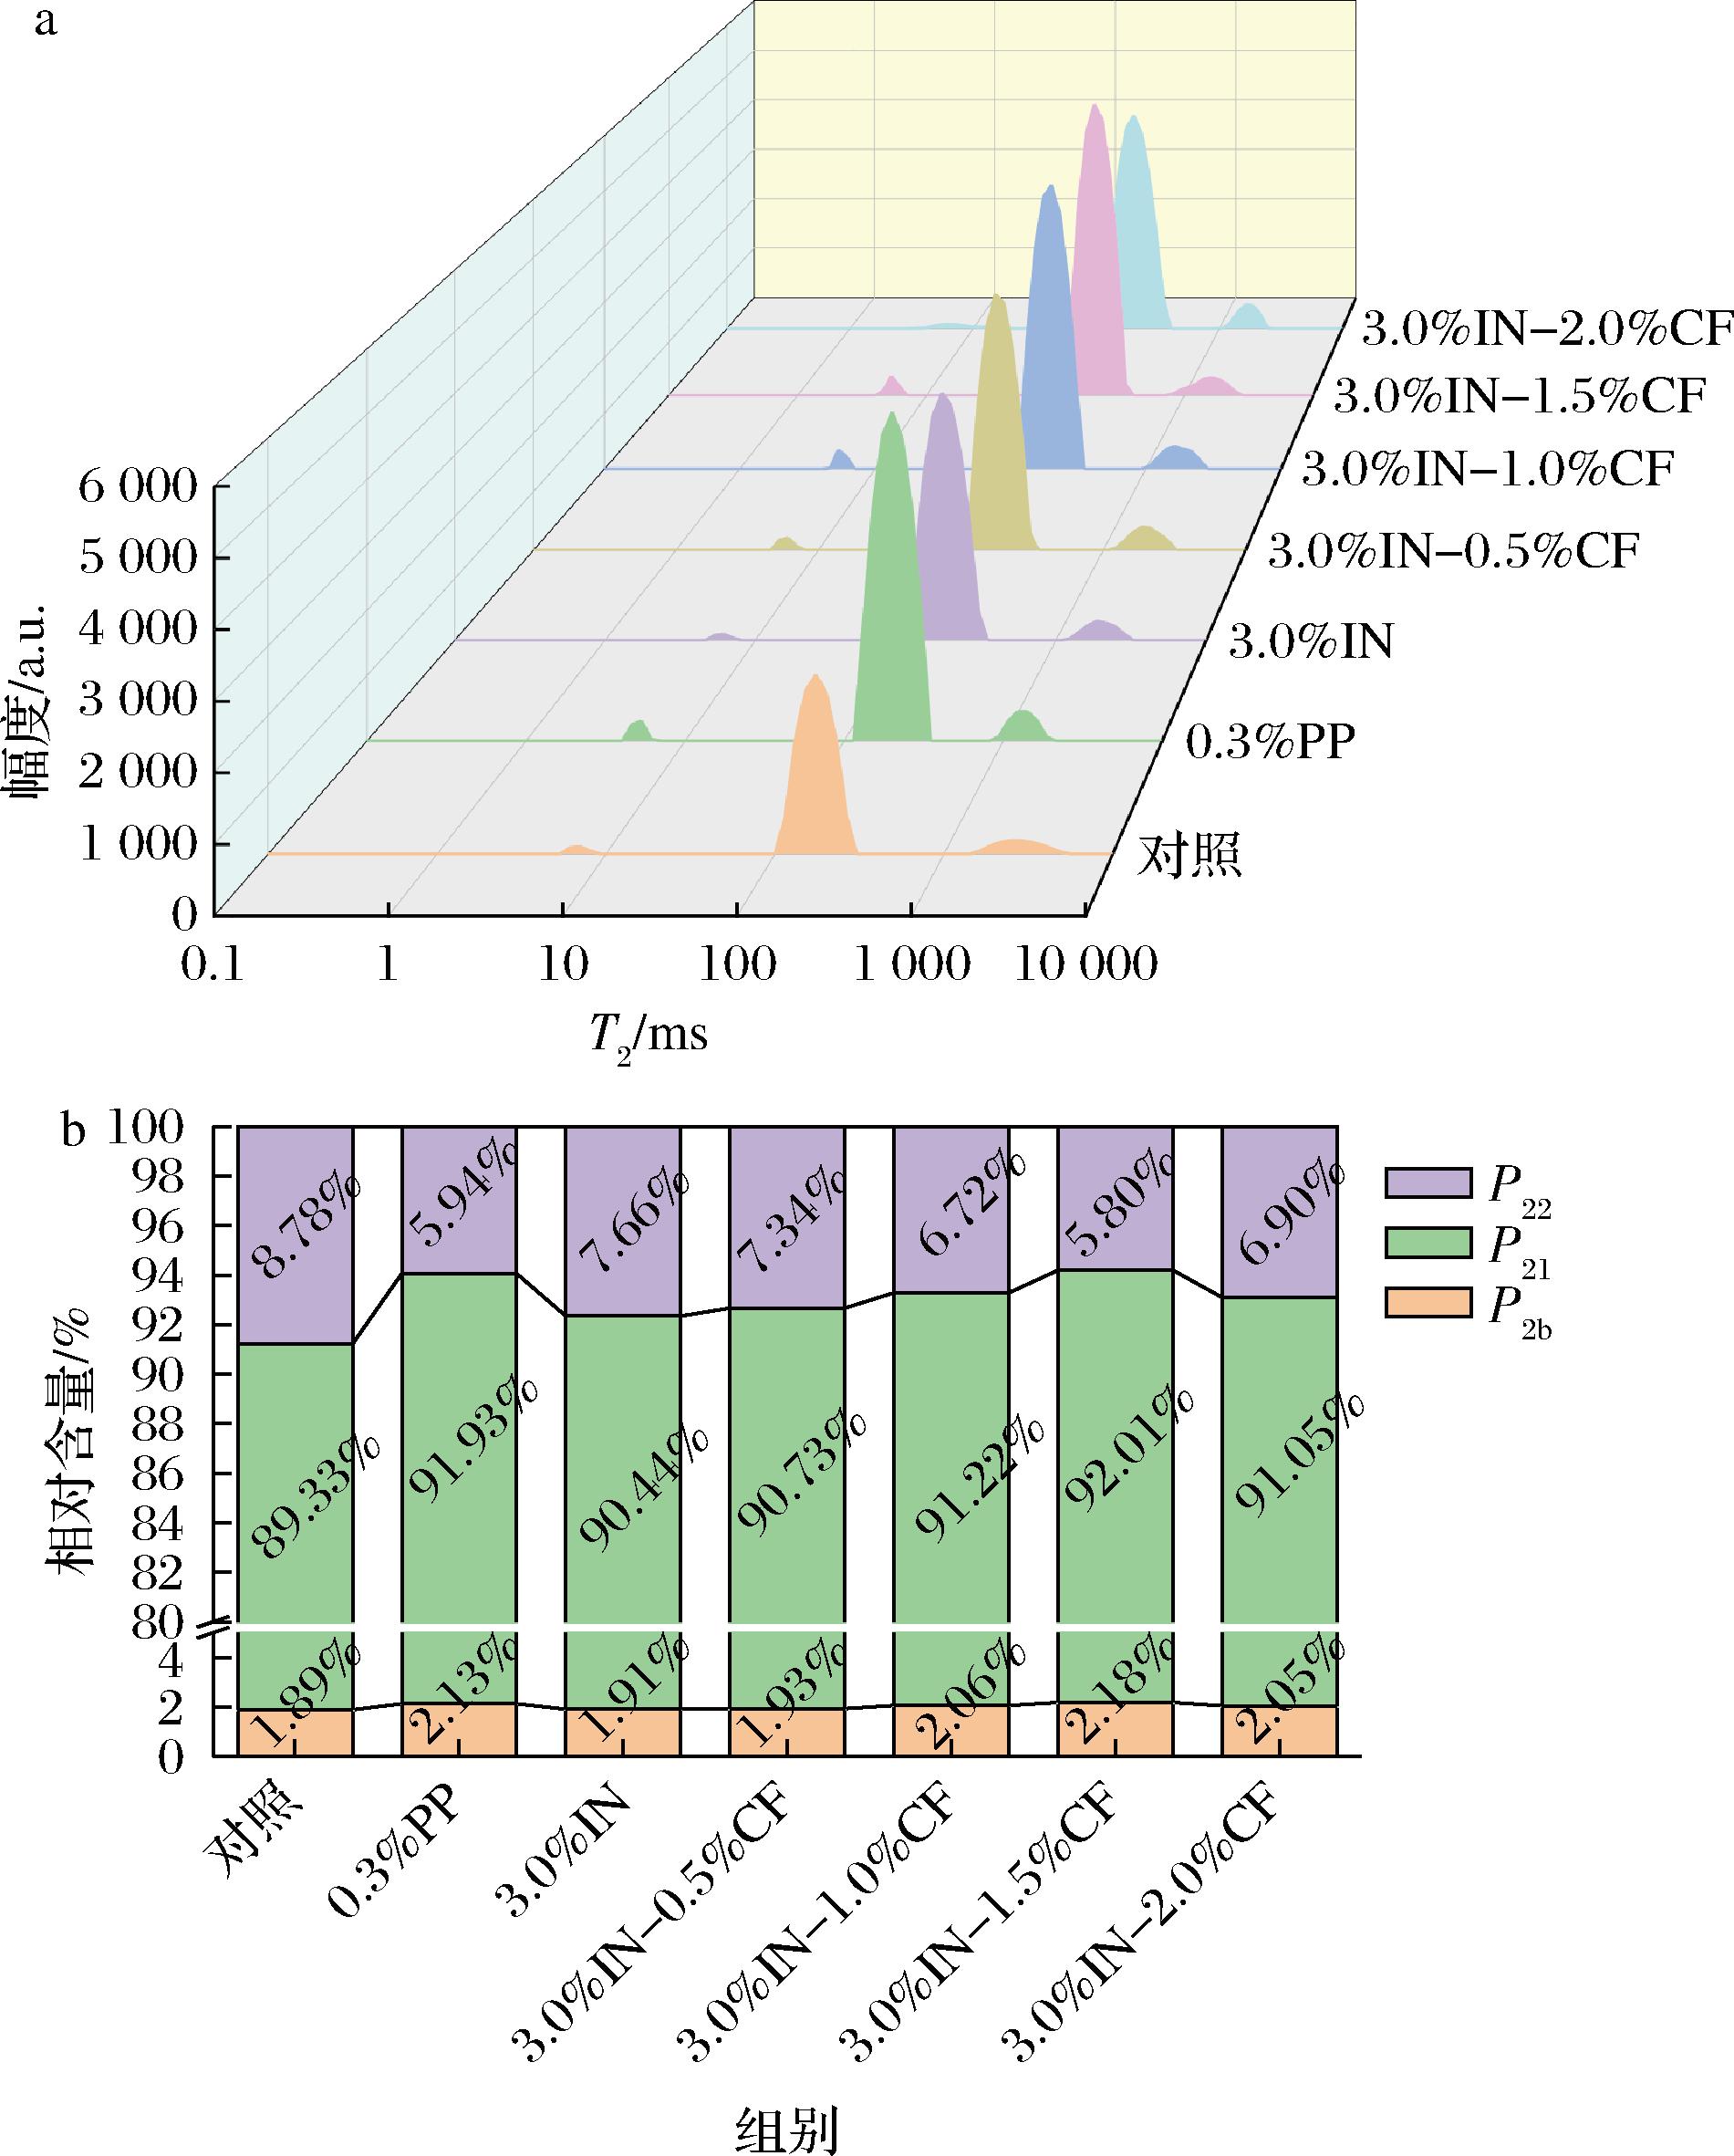
T2弛豫时间是评价蛋白凝胶水分分布变化的关键指标。凝胶水分分布情况呈现3个峰,分别为结合水(0.1~100 ms)、不易流动水(100~1 000 ms)及自由水(1 000~10 000 ms)。如图6所示,相比于对照组,添加磷酸盐后,凝胶的T22弛豫时间左移,同时自由水的含量减少,不易流动水的含量增加。这是因为磷酸盐将水分子吸附在凝胶内部,降低了水的流动性,从而增强了水分保持能力[30]。随着CF添加量的增加,凝胶的结合水比例(P2b)和不易流动水比例(P21)分别呈现先上升后下降的趋势,自由水比例(P22)呈现先下降后上升的趋势,且在3.0% IN协同1.5% CF时,MP凝胶的不易流动水的相对含量最高,为92.01%;自由水的相对含量最低,为5.80%。该添加量下的凝胶水分分布情况与0.3%磷酸盐组相类似。其原因在于IN与CF发挥协同增效作用,二者共同与蛋白质分子相互交织缠绕,将体系中游离的水分子牢牢束缚。然而,当CF添加量达到2.0%时,结合水含量降低,自由水含量增加。这是因为MP凝胶网络结构的承载能力有限,过多的多糖添加会影响凝胶网络自身的致密性,导致持水性下降[31],因此,较高膳食纤维添加量下蛋白凝胶的系水力降低。
a-凝胶水分分布;b-凝胶水分相对含量
图6 CF与IN复合对MP凝胶水分迁移的影响
Fig.6 Effect of CF combined with IN on the water migration of MP gel
2.2.2 复合膳食纤维对羊肉MP凝胶蒸煮损失及持水性的影响
通过对蛋白质蒸煮损失及持水性的测定,能直观反映添加复合膳食纤维后凝胶结构对水分子的束缚能力。如图7-a所示,对照组的蒸煮损失率为27.73%,显著高于其他处理组(P<0.05),添加磷酸盐或膳食纤维均能降低MP凝胶的蒸煮损失率。此外,随着CF添加量的增加,蛋白凝胶的蒸煮损失呈现先降低后升高的趋势。当添加3% IN及1.5% CF时,蒸煮损失率达到最低(15.04%),这表明IN与CF的协同作用有助于降低无磷肉制品蒸煮过程中的汁液流失。曹云刚等[16]在研究苹果膳食纤维对MP凝胶性能的影响时,也得到了相似的结果,低浓度苹果膳食纤维降低了凝胶的蒸煮损失。如图7-b所示,凝胶持水性的变化与蒸煮损失相一致,相比于对照组,IN与CF的添加显著提升了凝胶的持水性(P<0.05),当CF添加量达到2.0%时,持水性降低。这是因为CF中纤维素的空间填充作用,使得MP的凝胶网络结构更加致密,将游离在系统中的水分牢牢吸附在凝胶基质中,从而提高了持水性[32]。然而,纤维素在高浓度下容易聚集,聚集体的大量形成破坏了蛋白质网络的连续相,从而导致水分流失[33]。
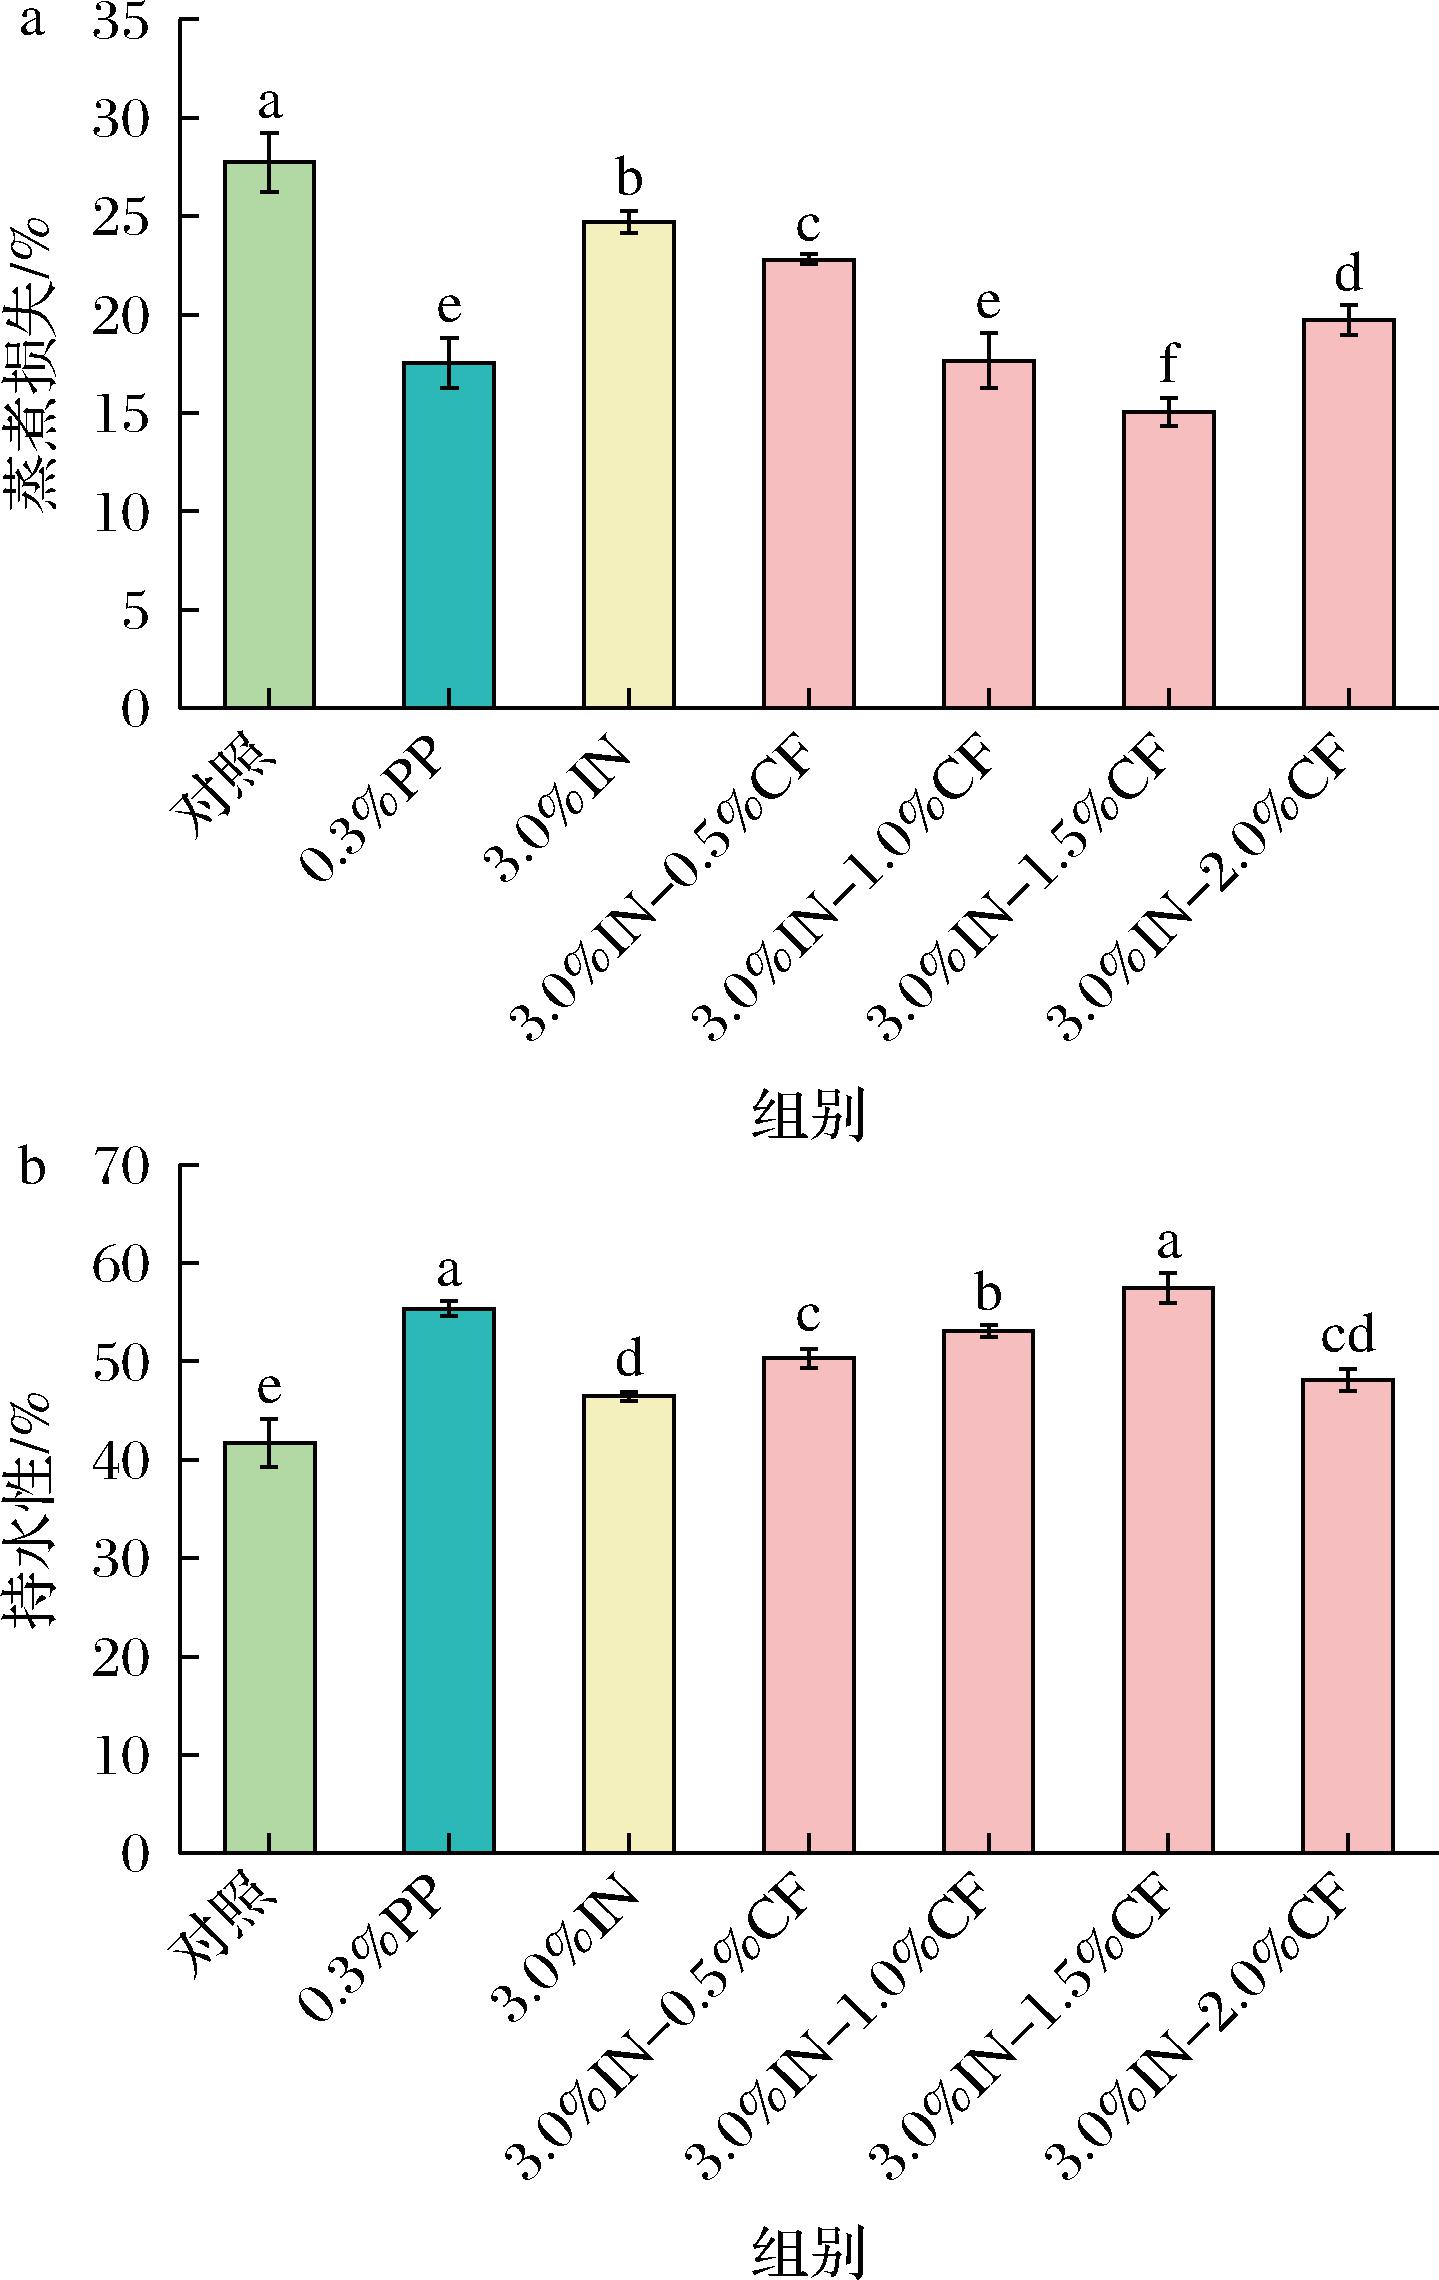
a-凝胶蒸煮损失;b-凝胶持水性
图7 CF与IN复合对MP凝胶蒸煮损失及持水性的影响
Fig.7 Effect of CF combined with IN on cooking loss and water holding capacity of MP gel
2.3 IN协同CF改善MP结构及凝胶系水力的潜在机制
结合以上研究结果,总结了3.0% IN协同不同浓度的CF可能影响羊肉蛋白结构及凝胶系水力的潜在机制。如图8所示,相比于纯MP,添加IN及CF能够促进蛋白质之间的相互交联,膳食纤维填充于MP形成的网络结构中,增强其对水分子的束缚能力。当3.0% IN单独作用于MP时,蛋白结构未受到CF的影响,其α-螺旋含量较高,不利于有序的凝胶网络结构的形成,凝胶孔隙较大,截留体系中水分子的能力相对较差。当IN协同低浓度CF作用于MP时,少量CF的加入使得MP的α-螺旋结构展开,促进α-螺旋结构到β-折叠结构的转变,加热后,CF能弥补IN造成凝胶空间结构过大的劣变,IN、CF与MP相互作用,形成连续、致密的三维网络结构,将游离的水分束缚在凝胶体系中,提升蛋白凝胶的系水力。然而,当3.0% IN协同2.0% CF时,容易形成大量的聚集体,破坏了蛋白质网络的连续相,使凝胶网络结构变得松散,从而导致水分流失。
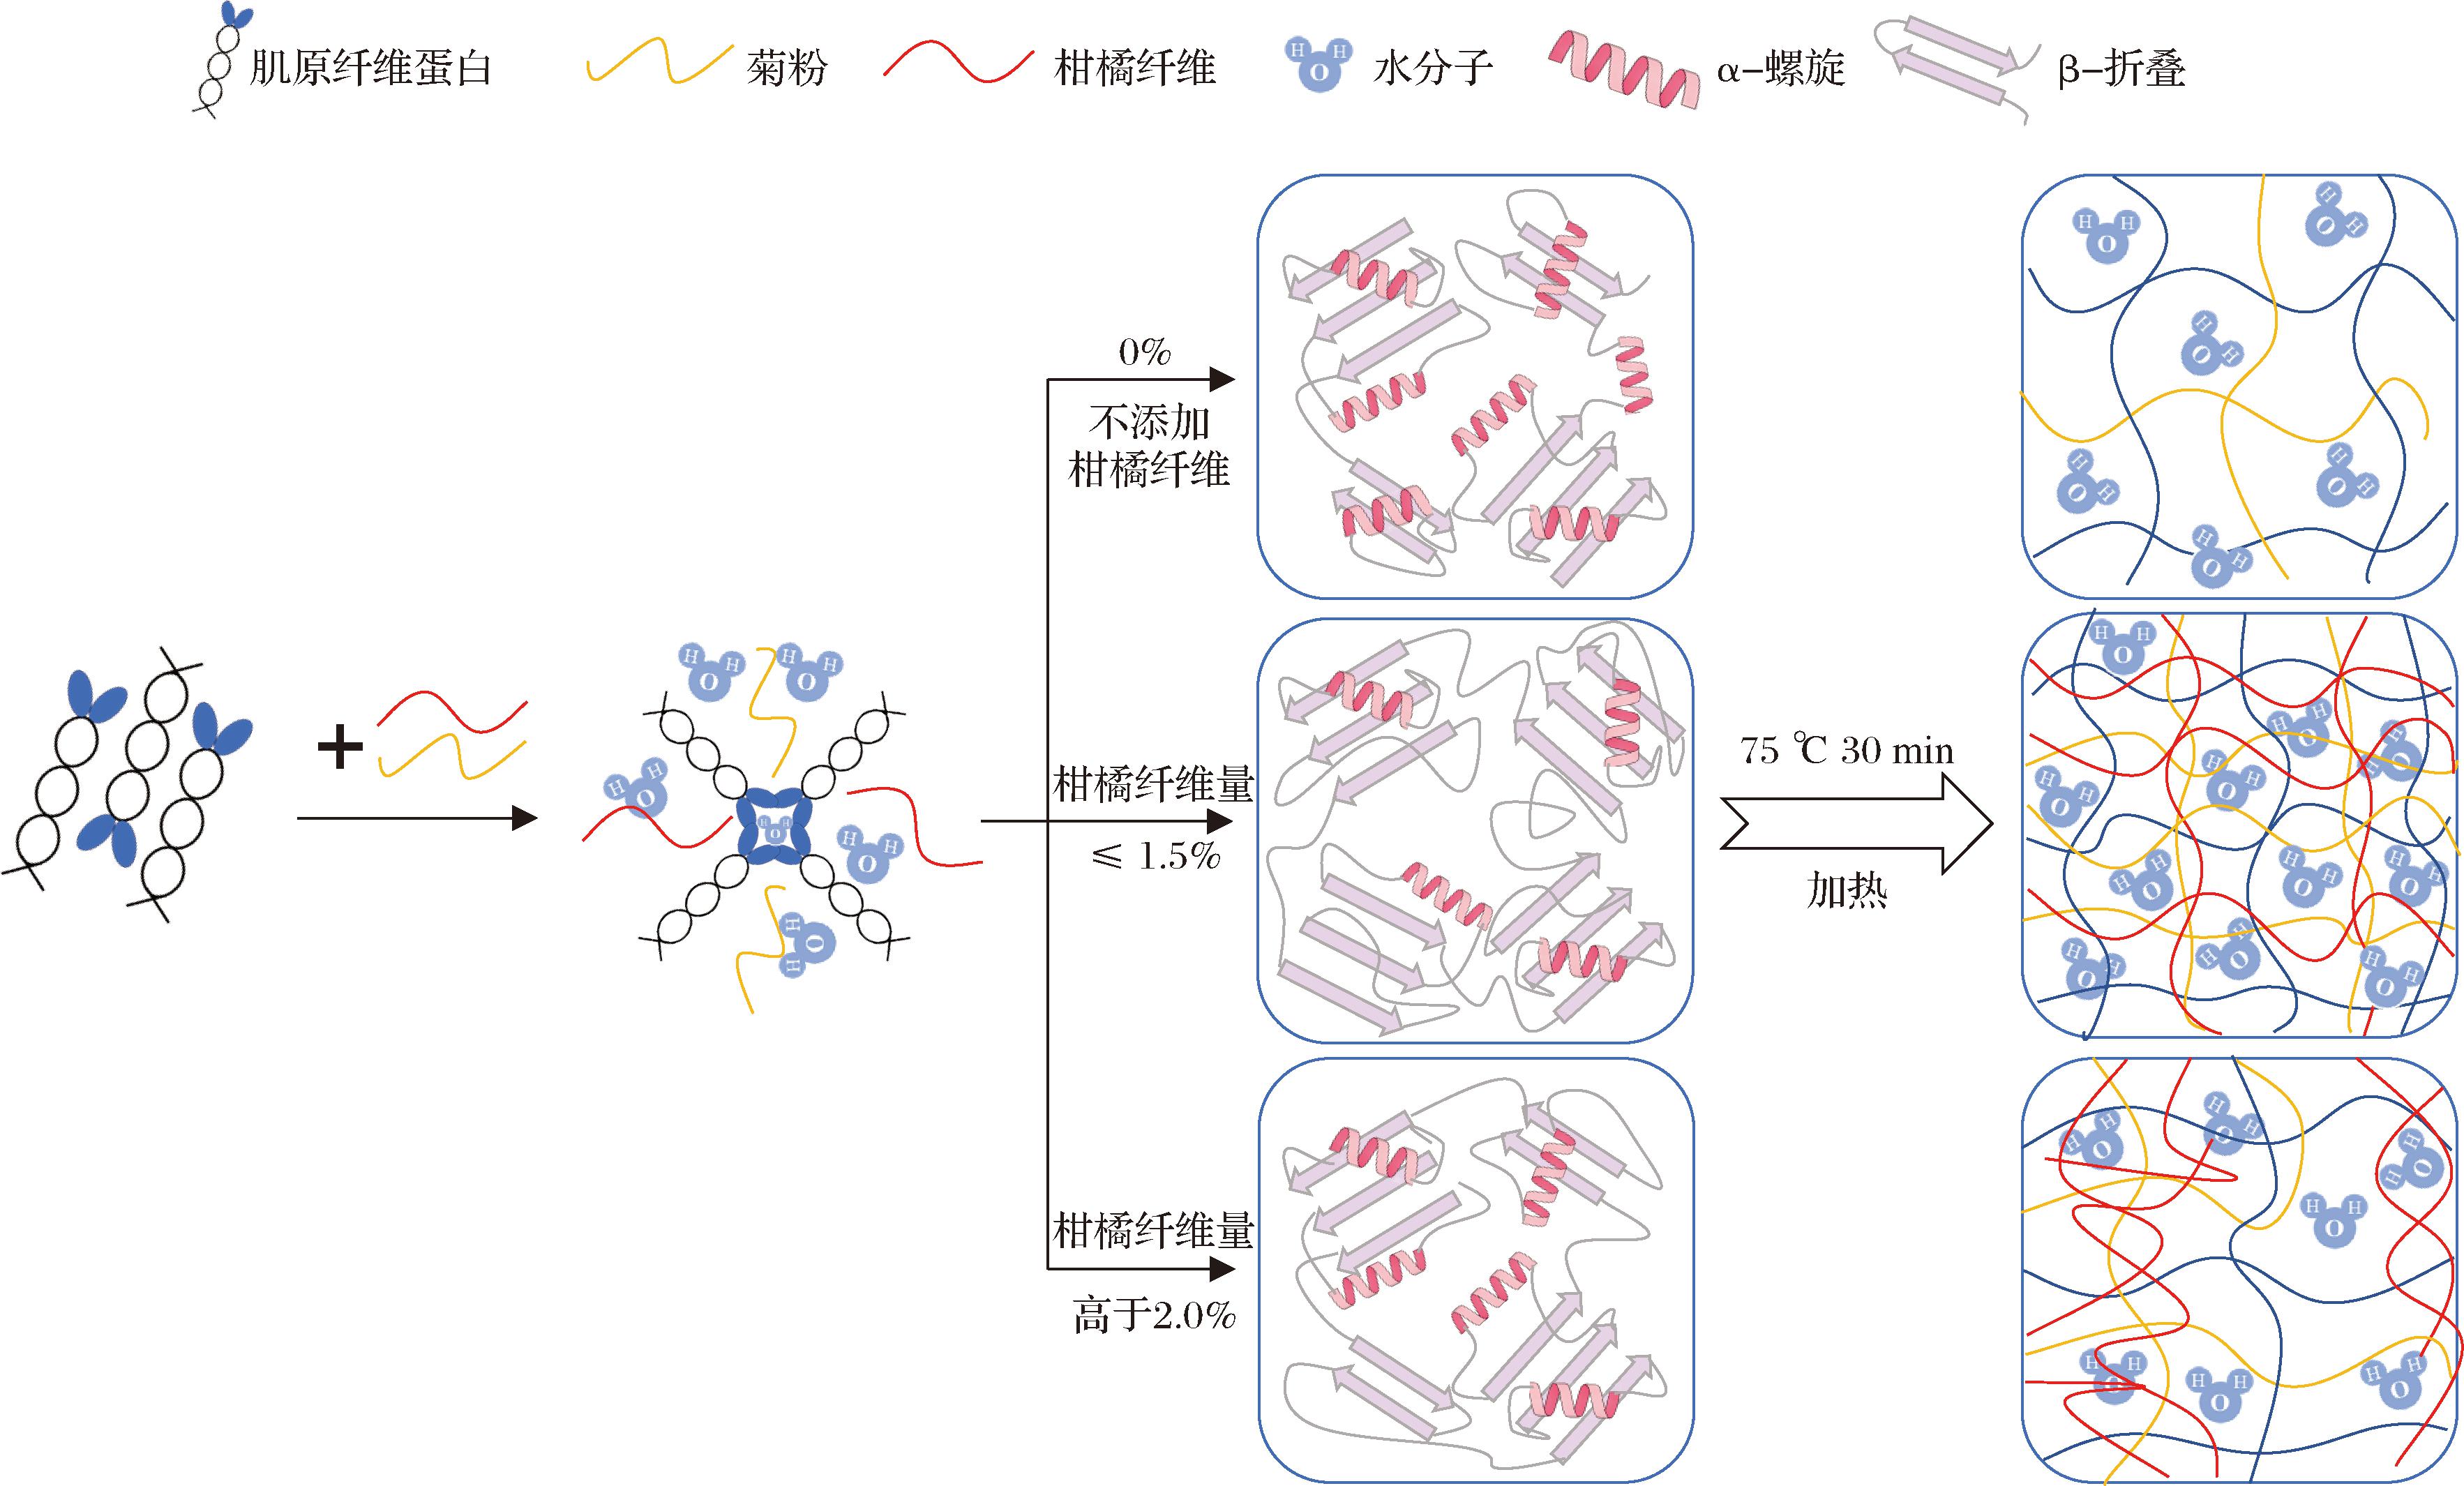
图8 IN协同不同浓度CF改善MP结构及系水力的潜在机制
Fig.8 Potential mechanism of IN combined with different concentrations of CF to improve MP structure and water retention
3 结论与讨论
本研究考察了IN(3.0%)协同不同浓度的CF,对羊肉MP凝胶系水力的提升作用,并通过阐释蛋白的结构变化,分析了相关的水分保持机理。结果表明,与未添加任何保水剂的对照组相比,添加IN及CF显著提高了羊肉MP的α-螺旋含量,促进蛋白结构展开,二硫键交联增加,蛋白交联聚集,提高了凝胶的系水力。随着CF添加量的增加,MP总巯基含量、表面疏水性、荧光强度及凝胶蒸煮损失率和自由水含量,呈先降低后升高的趋势。当3.0% IN与1.5% CF协同作用于MP时,能更有效地维持蛋白二级结构和三级结构的稳定性,增强对水分的束缚能力,促进自由水向不易流动水转化。SDS-PAGE结果显示,添加CF增加了蛋白聚合程度,这种聚合大多由二硫键交联产生;且随CF添加量的增加,二硫键及二硫键外的交联逐渐增强。然而,当CF添加量达到2.0%时,会引起蛋白质过度聚集,破坏了MP凝胶结构,使结构松散,降低了持水力,导致水分流失。未来可深入探讨二者协同与MP作用的具体力的形式及关键氨基酸作用位点,结合IN协同CF添加量对羊肉MP的作用机理,将2种膳食纤维复配替代磷酸盐保水剂,为加工肉制品中磷酸盐的替代提供理论依据,也为推动清洁标签及低盐肉制品的产业化发展提供参考。
[1] Thangavelu K P, Kerry J P, Tiwari B K, et al.Novel processing technologies and ingredient strategies for the reduction of phosphate additives in processed meat[J].Trends in Food Science &Technology, 2019, 94:43-53.
[2] 聂鹏霏, 李悦欣, 刘昊天, 等.无磷保水剂对乳化肉糜流动性、流变特性及乳化肠品质的影响[J].食品科学, 2025, 46(21):80-89.Nie P F, Li Y X, Liu H T, et al.Effects of non-phosphate water-retaining agents on the fluidity and rheological properties of emulsified meat batters and the quality of emulsified sausages[J].Food Science, 2025, 46(21):80-89.
[3] Song J H, Pan T, Wu J P, et al.The improvement effect and mechanism of citrus fiber on the water-binding ability of low-fat frankfurters[J].Journal of Food Science and Technology-Mysore, 2016, 53(12):4197-4204.
[4] 张明成, 常光强, 王族, 等.不同柑橘纤维及添加量对酱牛肉出品率及品质的影响[J].食品科学, 2024, 45(11):226-234.Zhang M C, Chang G Q, Wang Z, et al.Effects of addition of different types and amounts of citrus fibers on the yield and quality of sauced beef[J].Food Science, 2024, 45(11):226-234.
[5] Wu Q R, Zang M W, Zhao B, et al.Effect of citrus fiber on the phosphate-mediated gel properties of myofibrillar protein and partial replacement of phosphate[J].LWT, 2023, 173:114274.
[6] Powell M J, Sebranek J G, Prusa K J, et al.Evaluation of citrus fiber as a natural replacer of sodium phosphate in alternatively-cured all-pork Bologna sausage[J].Meat Science, 2019, 157:107883.
[7] Meyer D, Bayarri S, Tarrega A, et al.Inulin as texture modifier in dairy products[J].Food Hydrocolloids, 2011, 25(8):1881-1890.
[8] Paglarini C D, Vidal V A S, Ribeiro W, et al.Using inulin based emulsion gels as fat substitute in salt reduced Bologna sausage[J].Journal of the Science of Food and Agriculture, 2021, 101(2):505-517.
[9] Tomaschunas M, Zoerb R, Fischer J, et al.Changes in sensory properties and consumer acceptance of reduced fat pork Lyon-style and liver sausages containing inulin and citrus fiber as fat replacers[J].Meat Science, 2013, 95(3):629-640.
[10] 马可心, 相海峤, 于潇, 等.柑橘纤维与菊粉添加量对羊肉蛋白结构及肉糜品质的影响[J].食品工业科技, 2025, 46(8):43-51.Ma K X, Xiang H Q, Yu X, et al.Effects of citrus fiber and inulin addition on the lamb protein structure and mince quality[J].Science and Technology of Food Industry, 2025, 46(8):43-51.
[11] Zhao D B, Yan S L, Liu J L, et al.Effect of chickpea dietary fiber on the emulsion gel properties of pork myofibrillar protein[J].Foods, 2023;12(13):2597.
[12] 陶迎梅, 李长春, 邓孟胜, 等.高压静电场处理后牛肉在干腌期间质构及肌原纤维蛋白特性的变化[J].食品与发酵工业, 2025, 51(21):313-321.Tao Y M, Li C C, Deng M S, et al.Changes in texture and myofibrillar protein characteristics of beef treated with high voltage electrostatic field during dry curing[J].Food and Fermentation Industries, 2025, 51(21):313-321.
[13] Chelh I, Gatellier P, Véronique S.Technical note:A simplified procedure for myofibril hydrophobicity determination[J].Meat Science, 2006, 74(4):681-683.
[14] 曹莹莹, 郭晓蕊, 李怀玉.肌球蛋白的提取纯化及羟自由基氧化对其氧化位点的研究[J].食品工业科技, 2026,47(11):137-148.Cao Y Y, Guo X R, Li H Y.Extraction and purification of myosin and study on the effects of hydroxyl radical oxidation on its oxidation sites[J].Science and Technology of Food Industry, 2026,47(11):137-148.
[15] Zhu C Y, Zhang S L, Zhu N, et al.Effects of citrus fiber on the emulsifying properties and molecular structure of mutton myofibrillar protein:An underlying mechanisms study[J].Food Bioscience, 2023, 51:8102304.
[16] 曹云刚, 王凡, 艾娜丝, 等.苹果膳食纤维对猪肉肌原纤维蛋白凝胶性能的影响[J].农业机械学报, 2020, 51(7):365-371.Cao Y G, Wang F, Ai N S, et al.Effect of apple dietary fiber on gel properties of porcine myofibrillar protein[J].Transactions of the Chinese Society for Agricultural Machinery, 2020, 51(7):365-371.
[17] Jia J J, Gao X, Hao M H, et al.Comparison of binding interaction between β-lactoglobulin and three common polyphenols using multi-spectroscopy and modeling methods[J].Food Chemistry, 2017, 228:143-151.
[18] Han K Y, Li S S, Yang Y L, et al.Mechanisms of inulin addition affecting the properties of chicken myofibrillar protein gel[J].Food Hydrocolloids, 2022, 131:107843.
[19] Chai J L, Xu X L, Zhao X.Effects of polysaccharides on the solubilization of myofibrillar protein in aqueous solution:A comparative study[J].Food Hydrocolloids, 2025, 164:111193.
[20] 唐令奎, 魏海燕, 龙廷渟, 等.菊粉对蛋清-大豆分离蛋白复合蛋白起泡性能的影响及机理初探[J].食品与发酵工业, 2025, 51(13):212-217.Tang L K, Wei H Y, Long T T, et al.Effect of inulin on foaming performance of egg white-soy protein isolate and exploration of its action mechanism[J].Food and Fermentation Industries, 2025, 51(13):212-217.
[21] Zorba O, Gokalp H Y, Yetim H, et al.Model system evaluations of the effects of different levels of K2HPO4 NaCl and oil temperature on emulsion stability and viscosity of fresh and frozen Turkish style meat emulsions[J].Meat science, 1993, 34(2):145-161.
[22] Zhang Z Y, Yang Y L, Zhou P, et al.Effects of high pressure modification on conformation and gelation properties of myofibrillar protein[J].Food Chemistry, 2017, 217:678-686.
[23] 曾淑薇, 李吉, 熊善柏, 等.磷酸盐对草鱼肌原纤维蛋白结构的影响[J].食品科学, 2014, 35(23):48-51.Zeng S W, Li J, Xiong S B, et al.Effects of phosphates on the structure of myofibrillar proteins from grass carp muscle[J].Food Science, 2014, 35(23):48-51.
[24] Zhang Y M, Dong M, Zhang X Y, et al.Effects of inulin on the gel properties and molecular structure of porcine myosin:A underlying mechanisms study[J].Food Hydrocolloids, 2020, 108:105974.
[25] 付丽, 庄军辉, 高雪琴, 等.κ-卡拉胶与亚麻籽胶复配对成型火腿品质的影响[J].肉类研究, 2021, 35(12):13-19.Fu L, Zhuang J H, Gao X Q, et al.Effects of κ-carrageenan and its combination with flaxseed gum on the quality of molded ham[J].Meat Research, 2021, 35(12):13-19.
[26] 游刚, 王昌宇, 牛改改, 等.加热温度对罗非鱼肌球蛋白结构及功能特性的影响[J].食品工业科技, 2026,47(8):132-142.You G, Wang C Y, Niu G G, et al.Effect of heating temperature on the structure and functional properties of tilapia myosin[J].Science and Technology of Food Industry, 2026,47(8):132-142.
[27] S nchez-Gonzlez I, Rodríguez-Casado A, Careche M, et al.Raman analysis of surimi gelation by addition of wheat dietary fibre[J].Food Chemistry, 2009, 112(1):162-168.
[28] 胡婷, 屈莎, 唐善虎, 等.低盐环境下蛋白质氧化对牦牛肌肉结构及持水性的影响[J].食品科学, 2023, 44(10):38-45.Hu T, Qu S, Tang S H, et al.Effect of protein oxidation on the structure and water-holding capacity of yak muscle under low salinity environment[J].Food Science, 2023, 44(10):38-45.
[29] Zhang Y M, Chen L, Lyu Y Q, et al.Inhibition of interaction between epigallocatechin-3-gallate and myofibrillar protein by cyclodextrin derivatives improves gel quality under oxidative stress[J].Food Research International, 2018, 108:8-17.
[30] 王瑞, 周磊, 张万刚.菠萝蜜果皮多糖对低盐猪肌原纤维蛋白凝胶特性的影响[J].南京农业大学学报, 2026,49(4):902-909.Wang R, Zhou L, Zhang W G.Effect of jackfruit peel polysaccharide on gel properties of low-salt pork myofibrillar protein[J].Journal of Nanjing Agricultural University, 2026,49(4):902-909.
[31] 赵洪雷, 郭汪松, 吕亚楠, 等.豌豆分离蛋白-可得然胶基乳液凝胶对金线鱼鱼糜凝胶品质的影响[J].中国食品学报, 2025, 25(8):197-207.Zhao H L, Guo W S, Lyu Y N, et al.Effect of pea protein isolate-curdlan based emulsion gels on the gel quality of Nemipterus virgatus Surimi[J] Journal of Chinese Institute of Food Science and Technology, 2025, 25(8):197-207.
[32] Hu H Y, Pereira J, Xing L J, et al.Thermal gelation and microstructural properties of myofibrillar protein gel with the incorporation of regenerated cellulose[J].LWT-Food Science and Technology, 2017, 86:14-19.
[33] Shen R X, Tian X J, Wang X H, et al.Fibrous cellulose improves the strength and water retention of heat-induced myofibrillar protein gel by microstructure enhancement[J].Food Hydrocolloids, 2024, 147:109437.