鸡肉肌原纤维蛋白(myofibrillar proteins,MPs)基乳液是鸡肉丸、香肠等肉糜制品加工核心中间体系,其乳化性能、流变特性及贮存稳定性决定最终产品质构品质、保水性与货架期。但加工与贮藏中,MPs易受活性氧(reactive oxygen species,ROS)攻击氧化,导致蛋白构象破坏、聚集加剧,使乳液乳化活性降低、流变特性劣变,影响肉制品加工品质[1]。所以,抑制MPs氧化并改善其乳液功能特性是肉品加工关键难题。
天然植物提取物富含抗氧化成分,具有安全、高效、来源广的特点,是肉制品氧化调控的天然助剂。研究表明,茶多酚、迷迭香提取物等均可抑制肌原纤维蛋白氧化,改善乳液性能[2-3]。
杜仲叶是我国特有的药用植物副产物,资源丰富、成本低,其提取物(Eucommia ulmoides leaf extract,EULE)含活性成分,有抗氧化与抗炎活性[4]。前期实验表明,适宜剂量的EULE可缓解氧化应激致鸡肉MPs凝胶特性损伤[5],但EULE对氧化MPs关键结构指标与乳化特性协同调控机制不明,限制其在肉品加工中的应用。
基于此,本研究以芬顿(Fenton)体系诱导氧化的鸡肉MPs为对象,探究不同浓度EULE对氧化MPs结构特性的调控作用,分析乳液相关特性的变化规律,旨在阐明EULE调控氧化MPs结构和乳化特性的内在机制,为EULE在鸡肉制品品质改良中的应用提供理论指导与技术支撑。
1 材料与方法
1.1 材料与试剂
新鲜鸡大胸(屠宰后48 h内)、大豆油,市售。
杜仲叶提取物[EULE,按料液比1∶10提取,总多酚含量为(173.6±2.19) mg/g,总黄酮含量为(157.3±1.3) mg/g],西安沐萌生物制品有限公司;Na2HPO4、NaH2PO4、乙酸乙酯、MgCl2、十二烷基硫酸钠、脲素、乙二胺四乙酸(ethylenediaminetetraacetic acid,EDTA)、NaCl、NaOH、KBr、三氯乙酸、三羟甲基氨基甲烷(hydroxymethyl aminomethane,Tris)、溴酚蓝,天津巴斯夫化工有限公司;盐酸胍、FeCl3、抗坏血酸,天津市风船化学试剂科技有限公司;30%(体积分数)H2O2,烟台市双双化工有限公司;乙二醇双(2-氨基乙基醚)四乙酸[ethylene glycol-bis(2-aminoethylether)-N,N,N′,N′-tetraacetic acid,EGTA]、5,5-二硫代双(2-硝基苯甲酸)[5,5-dithiobis (2-nitrobenzoic acid,DTNB)]、2,4-二硝基苯肼(2,4-dinitrophenylhydrazine,DNPH)、β-巯基乙醇,上海圻明生物科技有限公司;牛血清白蛋白,上海阿拉丁生化科技股份有限公司。以上所有试剂均为分析纯。
1.2 仪器与设备
RS-JR20绞肉机,合肥荣事达电子电器有限公司;FA30高速均质机,上海昂尼仪器仪表有限公司;LG-25M冷冻离心机,四川蜀科仪器有限公司;UV-2600紫外可见分光光度计,日本日立公司;Cary eclipse荧光分光光度计,美国Aglient Cary eclipse公司;Nano 90马尔文激光粒度仪,英国马尔文仪器有限公司;BeNano 180 zeta电位分析仪,丹东百特有限公司;DHR-2旋转流变仪,沃特世科技有限公司;精密pH计,梅特勒-托利多仪器有限公司;VERTEX 70傅里叶中远红外光谱(Fourier transform infrared spectroscopy,FTIR)仪,德国布鲁克公司。
1.3 实验方法
1.3.1 EULE自由基清除能力的测定
羟自由基(·OH)、DPPH自由基及ABTS阳离子自由基清除能力的测定参考曹云刚[6]的方法,并计算其半数抑制浓度IC50。
1.3.2 鸡肉MPs的提取
根据尉立刚等[7]方法并结合实际调整,具体步骤如下:将鸡胸肉绞成肉泥,按料液比为1∶4(g∶mL)加入预冷提取缓冲液(10 mmol/L Na3PO4、0.1 mol/L NaCl、2 mmol/L MgCl2、1 mol/L EGTA,pH 7.0),以8 000 r/min转速间歇均质3 min(每均质30 s停30 s)。均质后用双层无菌纱布过滤,滤液转移至离心瓶,4 ℃,10 000 r/min离心15 min,收集沉淀弃上清液,重复离心2次除可溶性杂质。将粗提沉淀按1∶4(g∶mL)料液比重悬于0.1 mol/L NaCl洗涤缓冲液,重复均质、过滤及离心流程2次获纯化MPs。提取全程控温为4 ℃,提取后MPs需在48 h内完成后续实验;以牛血清白蛋白为标准品,用考马斯亮蓝法测MPs最终浓度。
1.3.3 EULE的添加及氧化体系的构建
参照常海军等[8]的方法并结合实际需求调整,操作如下:用15 mmol/L磷酸缓冲液(含0.6 mol/L NaCl,pH 6.25)与Fenton氧化体系溶液(含30 μmol/L FeCl3、100 μmol/L抗坏血酸及3 mmol/L H2O2,均以该缓冲液配制),将MPs稀释至预设浓度。实验设5个处理组,分别为:空白对照组(不氧化、不含EULE)、氧化对照组(加Fenton氧化体系,EULE终质量浓度0 mg/mL)、0.2 mg/mL EULE处理组、0.6 mg/mL EULE处理组、1 mg/mL EULE处理组。将分组样品置于4 ℃冰箱,避光氧化12 h,氧化后样品用于后续指标测定。
1.3.4 羰基含量测定
参照陈腊梅等[9]的实验方法并结合实际调整,操作流程如下:用预冷磷酸缓冲液与pH 7.0氧化缓冲液作稀释体系,将MPs溶液质量浓度调至4 mg/mL。吸取各处理组样品1 mL于离心管,实验组加1 mL以2 mol/L HCl溶液配制的10 mmol/L DNPH溶液,对照组加等体积2 mol/L HCl溶液,避光孵育60 min。孵育结束,各管加1 mL质量浓度为200 g/L的三氯乙酸溶液,涡旋混匀后,4 ℃、12 000 r/min离心10 min,弃上清液。沉淀用1 mL体积比为1∶1的乙酸乙酯-乙醇混合液洗涤3次,每次洗涤后离心弃上清液。末次洗涤后,沉淀中加4 mL 6 mol/L盐酸胍溶液,37 ℃水浴保温20 min促溶,再在相同条件下离心,小心移取上清液,于370 nm波长下测吸光度值。羰基含量按摩尔吸光系数计算,结果以nmol/mg蛋白表示,计算如公式(1)所示:
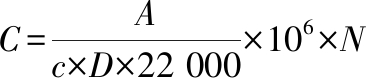
(1)
式中:C,羰基含量,nmol/mg;A,样品在370 nm波长处的吸光度值;c,MP溶液质量浓度,mg/mL;D,比色皿光程,cm;22 000,摩尔吸光系数;N,稀释倍数。
1.3.5 巯基含量测定
参照卢海立等[10]实验方法并结合实际条件调整,具体操作如下:以预冷磷酸缓冲液与氧化缓冲液(pH 7.0)为介质,将MP溶液调至4 mg/mL。测定游离巯基含量时,取1 mL样品液,先加9 mL含质量浓度为20 g/L SDS与10 mmol/L EDTA的0.02 mol/L Tris-HCl缓冲液(pH 6.8),再加1 mL Ellman试剂[由质量浓度为1 g/L DTNB溶于0.2 mol/L磷酸缓冲液(pH 8.0)配成],涡旋混匀后于4 ℃避光静置反应1 h,结束后在412 nm测吸光度。测定总巯基含量时,各处理组取1 mL稀释后的MP溶液,加9 mL 0.02 mol/L的Tris-HCl缓冲液(pH 6.8)(含8 mol/L尿素、20 g/L的SDS及10 mmol/L EDTA),加1 mL Ellman试剂启动反应,涡旋混匀后于40 ℃恒温水浴孵育30 min,其余测定步骤同游离巯基含量测定。巯基含量(游离及总巯基)依据相应的摩尔吸光系数计算,结果以nmol/mg蛋白表示,计算如公式(2)所示:
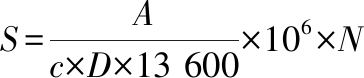
(2)
式中:S,巯基含量,nmol/mg;A,样品在412 nm波长处的吸光度值;c,MP溶液质量浓度,mg/mL;D,比色皿光程,cm;13 600,摩尔吸光系数;N,稀释倍数。
1.3.6 表面疏水性的测定
按方海砚等[11]的方法,用溴酚蓝(bromophenol blue,BPB)法测MPs表面疏水性。先用预冷的磷酸缓冲液与氧化缓冲液(pH 7.0)稀释MPs至5 mg/mL,取2 mL稀释液于10 mL离心管,加400 μL 1 mg/mL 的BPB溶液,涡旋振荡混匀后,在4 ℃以10 000 r/min离心15 min。离心结束,吸取上清液至新离心管并10倍稀释。设不含MP的磷酸盐缓冲液为空白对照组,在595 nm波长测稀释后上清液吸光度值。基于溴酚蓝与MP的结合能力表征样品表面疏水性,计算如公式(3)所示:
BPB结合量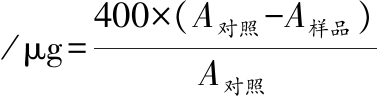
(3)
1.3.7 内源性色氨酸荧光光谱分析
用预冷的磷酸缓冲液和氧化缓冲液(pH 7.0)稀释MP样品,调控终质量浓度至1 mg/mL。接着,移取3 mL稀释后的MP溶液注入1 cm光程的玻璃比色皿。仪器参数设定:激发波长校准为290 nm,发射波长扫描区间为300~500 nm,激发狭缝与发射狭缝宽度均为10 nm,扫描速率为600 nm/min。以不含MP的空白缓冲液校准仪器基线后,测定并记录最大发射波长及对应的荧光强度值。
1.3.8 MP凝胶二级结构的测定
先制备MP凝胶:用预冷的磷酸及氧化缓冲液(pH 7.0)将MP质量浓度稀释至60 mg/mL得MP溶胶样品,将溶胶置于50 mL烧杯,封保鲜膜后水浴加热,以1 ℃/min从室温加热到80 ℃,并保持20 min。加热完成后,立即放冰水冷却,再放冰箱冷藏过夜。参照常海军等[12]的方法,使用傅立叶变换红外光谱仪测MPs二级结构,操作如下:称2 mg冻干MP凝胶样品和200 mg干燥KBr,研磨均匀后压制成透明薄片固定在样品台。设定扫描波数400~4 000 cm-1,分辨率4 cm-1,扫描32次。用PeakFit 4.0软件对酰胺Ι带特征谱区(1 600~1 700 cm-1)解析,先基线校正消除背景干扰,再用傅里叶去卷积算法提高分辨率,最后二阶导数拟合分峰,明确特征峰归属并归一化计算,得出蛋白质二级结构相对含量及构象变化。
1.3.9 MP凝胶分子间作用力的测定
参照Zhang等[13]的方法并加以优化,具体操作如下:取1.3.8节制备的MPs凝胶,准确称取2 g左右冻干凝胶粉末,加入8 mL提取液S1(0.5 mol/L NaCl溶液),6 000 r/min匀浆3 min,于4 ℃恒温振荡孵育1.5 h后,10 000×g、4 ℃离心15 min,收集上清液;沉淀重复上述S1提取操作1次,合并2次上清液(对应离子键结合的蛋白),于4 ℃暂存。将上述沉淀加入8 mL提取液S2(2.0 mol/L 尿素+0.5 mol/L NaCl混合溶液),6 000 r/min匀浆3 min,4 ℃振荡孵育1.5 h后,同条件离心15 min,收集上清液(对应氢键结合的蛋白)。沉淀继续加入8 mL提取液S2(7.5 mol/L尿素+0.5 mol/L NaCl混合溶液),重复上述匀浆、孵育、离心操作,收集上清液(对应疏水键结合的蛋白)。随后向沉淀中加入8 mL提取液S3(0.4 mol/L β-巯基乙醇+7.5 mol/L尿素+0.5 mol/L NaCl混合溶液,pH值调至7.2),6 000 r/min 匀浆3 min,4 ℃振荡孵育2 h后,同条件离心15 min,收集上清液(对应二硫键结合的蛋白)。最后,将S4提取后的沉淀加入2.5 mL 0.15 mol/L NaOH溶液,磁力搅拌30 min至完全溶解(对应非二硫共价键结合的蛋白)。采用考马斯亮蓝法分别测定各上清液及NaOH溶液中的蛋白质浓度,计算各部分蛋白占总蛋白的质量比例,依次表征MPs凝胶中离子键、氢键、疏水键、二硫键及非二硫共价键的相对作用强度。作用力的相对强度按其对应蛋白质量占总蛋白质量的百分比表示,计算如公式(4)所示:
占比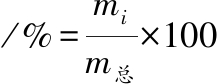
(4)
式中:mi,作用力(离子键/氢键/疏水键/二硫键/非二硫共价键)对应的蛋白质量,mg;m总,总蛋白质量为各作用力对应蛋白质量的总和,mg。
1.3.10 氧化介导的EULE-MPs乳液的制备
参照Cao等[14]的方法并适当修改,EULE-MPs乳液制备流程如下:用预冷氧化缓冲液将MPs稀释至10 mg/mL,加入不同质量浓度EULE,使其终质量浓度为0、0.2、0.6、1 mg/mL,同时设空白对照。磁力搅拌30 min至完全溶解,4 ℃冷藏平衡1 h作为水相;选大豆油为油相,60 ℃水浴预热10 min除气泡后冷却至室温;按油水比4∶1(mL∶mL)将油相缓慢加入水相并搅拌混匀,用均质机8 000 r/min高速剪切混合2 min形成粗乳液,再以1 000 r/min匀浆2次(每次30 s,间隔1 min)细化油滴,乳液现制现用。
1.3.11 乳液粒径的测定
使用激光粒度分析仪测定MPs乳液的粒径分布。使用预冷好的磷酸缓冲液和氧化缓冲液(pH 7.0)将样品稀释为1 mg/mL,分别取适量稀释液放入样品槽进行测定。完成光路校正后,设置测定参数:物质折射率1.52,介质设为水,折射率1.333。待遮光率正常后开始测试,记录表面加权平均直径D32和体积加权平均直径D43的值。
1.3.12 Zeta电位的测定
用预冷好的磷酸缓冲液和氧化缓冲液(pH 7.0)将各处理组的样品质量浓度稀释至1 mg/mL,从各处理组中分别吸取约2 mL样品于电位测定皿中,并在25 ℃的恒温条件下进行测量。
1.3.13 MPs乳液的乳化活性及乳化稳定性的测定
参照石源伟等[15]的测定方法并稍作修改,准确吸取100 μL均质后的新鲜乳液,缓慢加入10 mL 10 g/L 的SDS溶液,涡旋混匀;以10 g/L SDS溶液为空白对照,在紫外可见分光光度计上于波长500 nm处调零校准,取距容器底部1 mm处的稀释乳液样品测吸光值,记为A0(对应0 min检测值);将剩余稀释乳液室温静置10 min,按相同方式和条件再测吸光值,记为A10(对应10 min检测值);乳化活性(emulsifying activity index,EAI)与乳化稳定性(emulsion stability index,ESI)的计算如公式(5)和公式(6)所示:
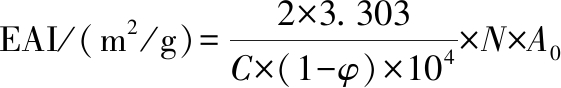
(5)
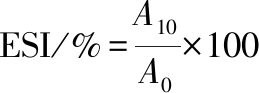
(6)
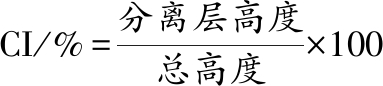
式中:A0,稀释乳浊液在测定初始时刻(0 min)的吸光值;A10,该稀释乳浊液静置10 min后测得的吸光值;C,MPs质量浓度,mg/mL;φ,乳液中油的体积分数;N,稀释倍数。
1.3.14 MPs乳液流变特性测定
参照Zhao等[16]的方法,采用旋转流变仪系统测定MPs乳液流变学特性。选用40 mm平行板并校准仪器,取适量MPs乳液样品均匀涂布于流变仪测试平台中央,确保样品覆盖面积与转子接触区域匹配;待平台下降至指定间隙,用塑料刮片刮除溢出样品使厚度均一,在夹具与样品边缘缝隙涂硅油密封防水分蒸发。稳态流变学测试中,设置剪切速率扫描范围0.1~100 s-1,记录不同剪切速率对应的剪切应力,从而获得MPs乳液表观黏度,分析其剪切稀化或增稠行为。动态振动频率扫描测试中,设置频率扫描范围0.1~100 Hz,对数递增扫描,记录储能模量(G′)与损耗模量(G″)随频率的动态变化规律。所有流变测试均在25 ℃恒温条件下进行,并进行3次平行重复,所得曲线为平均拟合结果。
1.3.15 MPs乳液贮存稳定性测定
参照常海军等[17]的方法测定制备的MPs乳液贮存稳定性。将新鲜制备的乳液分装于10 mL带盖离心管中,密封后竖直置于4 ℃冰箱静置贮存。分别于0、6、12 h观察并记录乳液外观,拍摄照片。同时,通过测量析出层高度和乳液总高度,计算乳析指数(creaming index,CI)以定量评估分层程度,计算如公式(7)所示:
(7)
1.4 数据分析与处理
文中所有实验均重复3次,结果以“平均值±标准差”表示。使用SPSS 21.0软件对数据进行单因素方差分析及显著性检验(P<0.05为差异显著),图表绘制使用Origin 2024Pro软件完成。
2 结果与分析
2.1 EULE的抗氧化能力测定
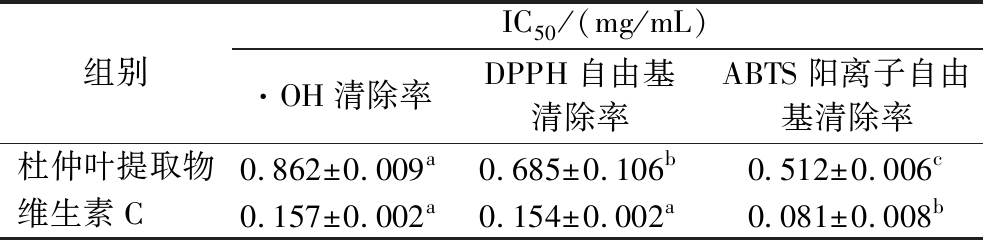
如图1所示,EULE对3种自由基(·OH、DPPH自由基、ABTS阳离子自由基)均表现出良好的清除能力,且清除率与提取物浓度呈正相关,显示出明确的浓度依赖性。经计算,EULE和维生素C对3种自由基的IC50值如表1所示,虽然EULE的IC50值高于维生素C,表明其单位质量的自由基清除效率低于纯维生素C,但其对ABTS阳离子自由基和DPPH自由基仍展现出较强的清除能力(IC50分别为0.512、0.685 mg/mL)。这初步证实了EULE富含具有广谱抗氧化活性的物质,为后续缓解蛋白质氧化损伤提供了能力基础。
表1 杜仲叶提取物和维生素C自由基清除率的IC50值
Table 1 IC50 values of E.ulmoides leaf extract and ascorbic acid for free radical scavenging activity
注:不同小写字母标注表示差异显著(P<0.05)。
组别IC50/(mg/mL)·OH清除率DPPH自由基清除率ABTS阳离子自由基清除率杜仲叶提取物0.862±0.009a0.685±0.106b0.512±0.006c维生素C0.157±0.002a0.154±0.002a0.081±0.008b
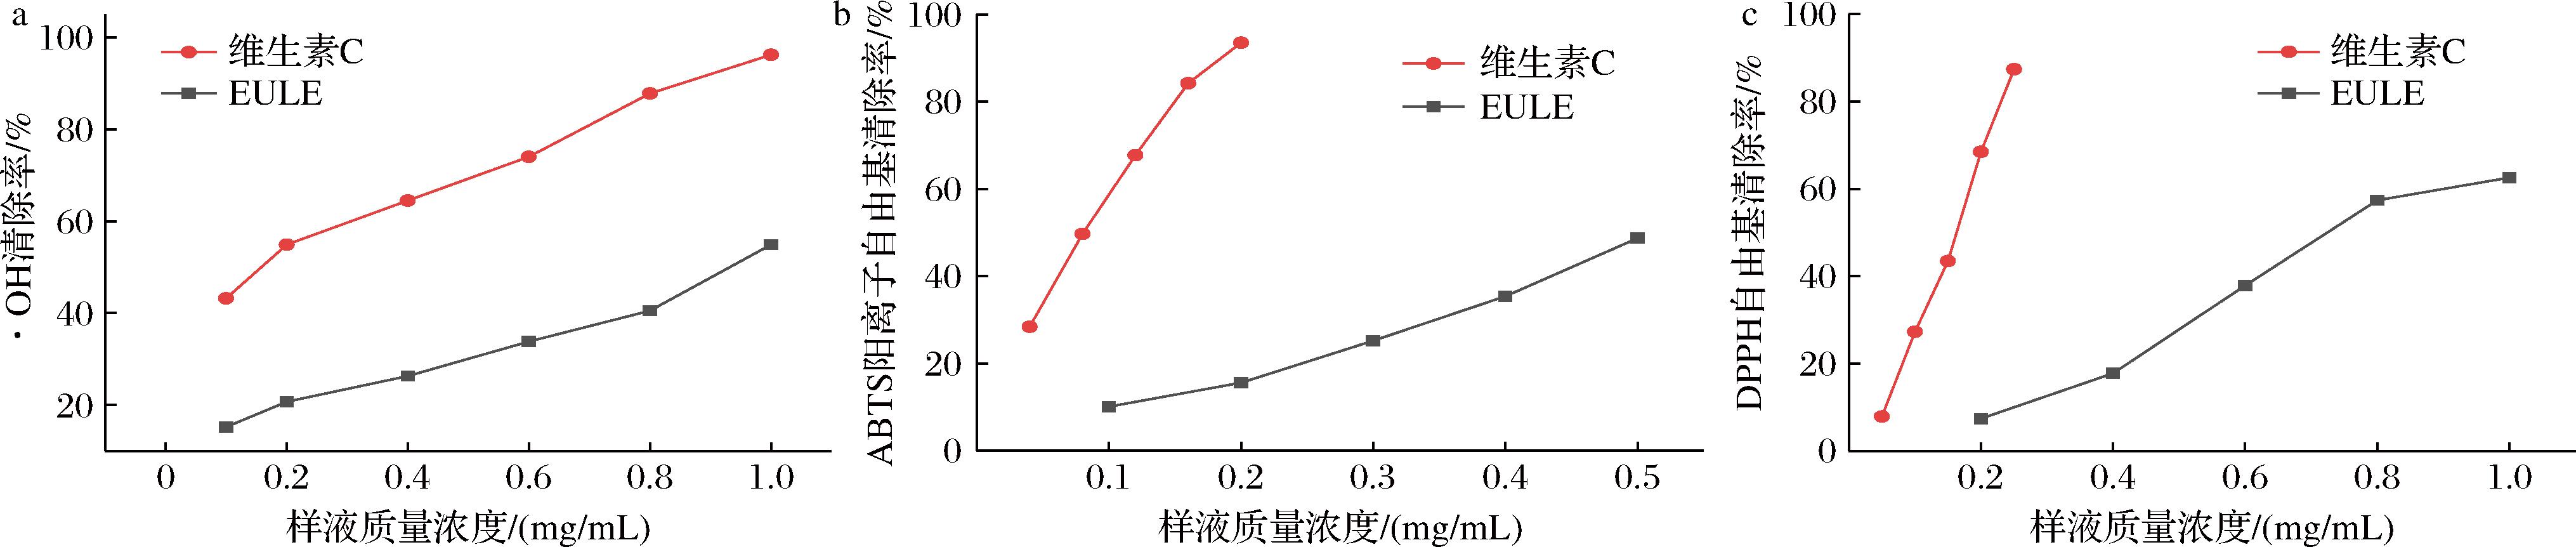
a-·OH清除率;b-ABTS阳离子自由基清除率;c-DPPH自由基清除率
图1 杜仲叶提取物的抗氧化能力测定
Fig.1 Determination of the antioxidant capacity of E.ulmoides leaf extract
2.2 EULE的添加对氧化MPs羰基和巯基含量的影响
羰基与巯基是表征MPs氧化损伤的双维度核心指标:羰基含量升高反映蛋白质主链共价修饰与空间结构破坏,巯基易被ROS氧化,二者共同体现MPs氧化应激下的结构损伤状态。从图2可以看出,空白对照组中MPs的羰基含量为3.35 nmol/mg,游离巯基与总巯基含量分别高达38.02 nmol/mg和40.12 nmol/mg;氧化处理后,MPs的羰基含量显著升至4.48 nmol/mg,而游离巯基与总巯基含量则分别显著下降至32.89 nmol/mg和37.56 nmol/mg(P<0.05)。这一结果与Utrera等[18]提出的氧化应激致MP构象改变、主链修饰及巯基氧化的结论一致,印证了氧化对MPs的损伤机制。加入不同浓度EULE后,MPs的羰基与巯基含量呈现差异化调控效果:0.2 mg/mL EULE作用不显著;0.6 mg/mL EULE则能有效抑制氧化损伤,使羰基含量显著降低,巯基含量显著回升(P<0.05),表明该浓度下EULE的抗氧化成分足以清除体系中的ROS,保护蛋白质主链和侧链免受攻击。1 mg/mL组氧化损伤加重,羰基含量进一步升高,巯基含量显著下降(P<0.05),结合后续分子间作用力分析,推测高浓度EULE在体系中可能引发了复杂的非抗氧化效应,如诱导蛋白质分子发生物理聚集或异常交联,从而暴露出更多易被氧化的位点或造成巯基的掩蔽与消耗。这与Wang等[19]报道的“适宜浓度种子多酚可改善MP氧化损伤,而高浓度多酚因自氧化反而会加剧MP氧化”的研究结论相一致。
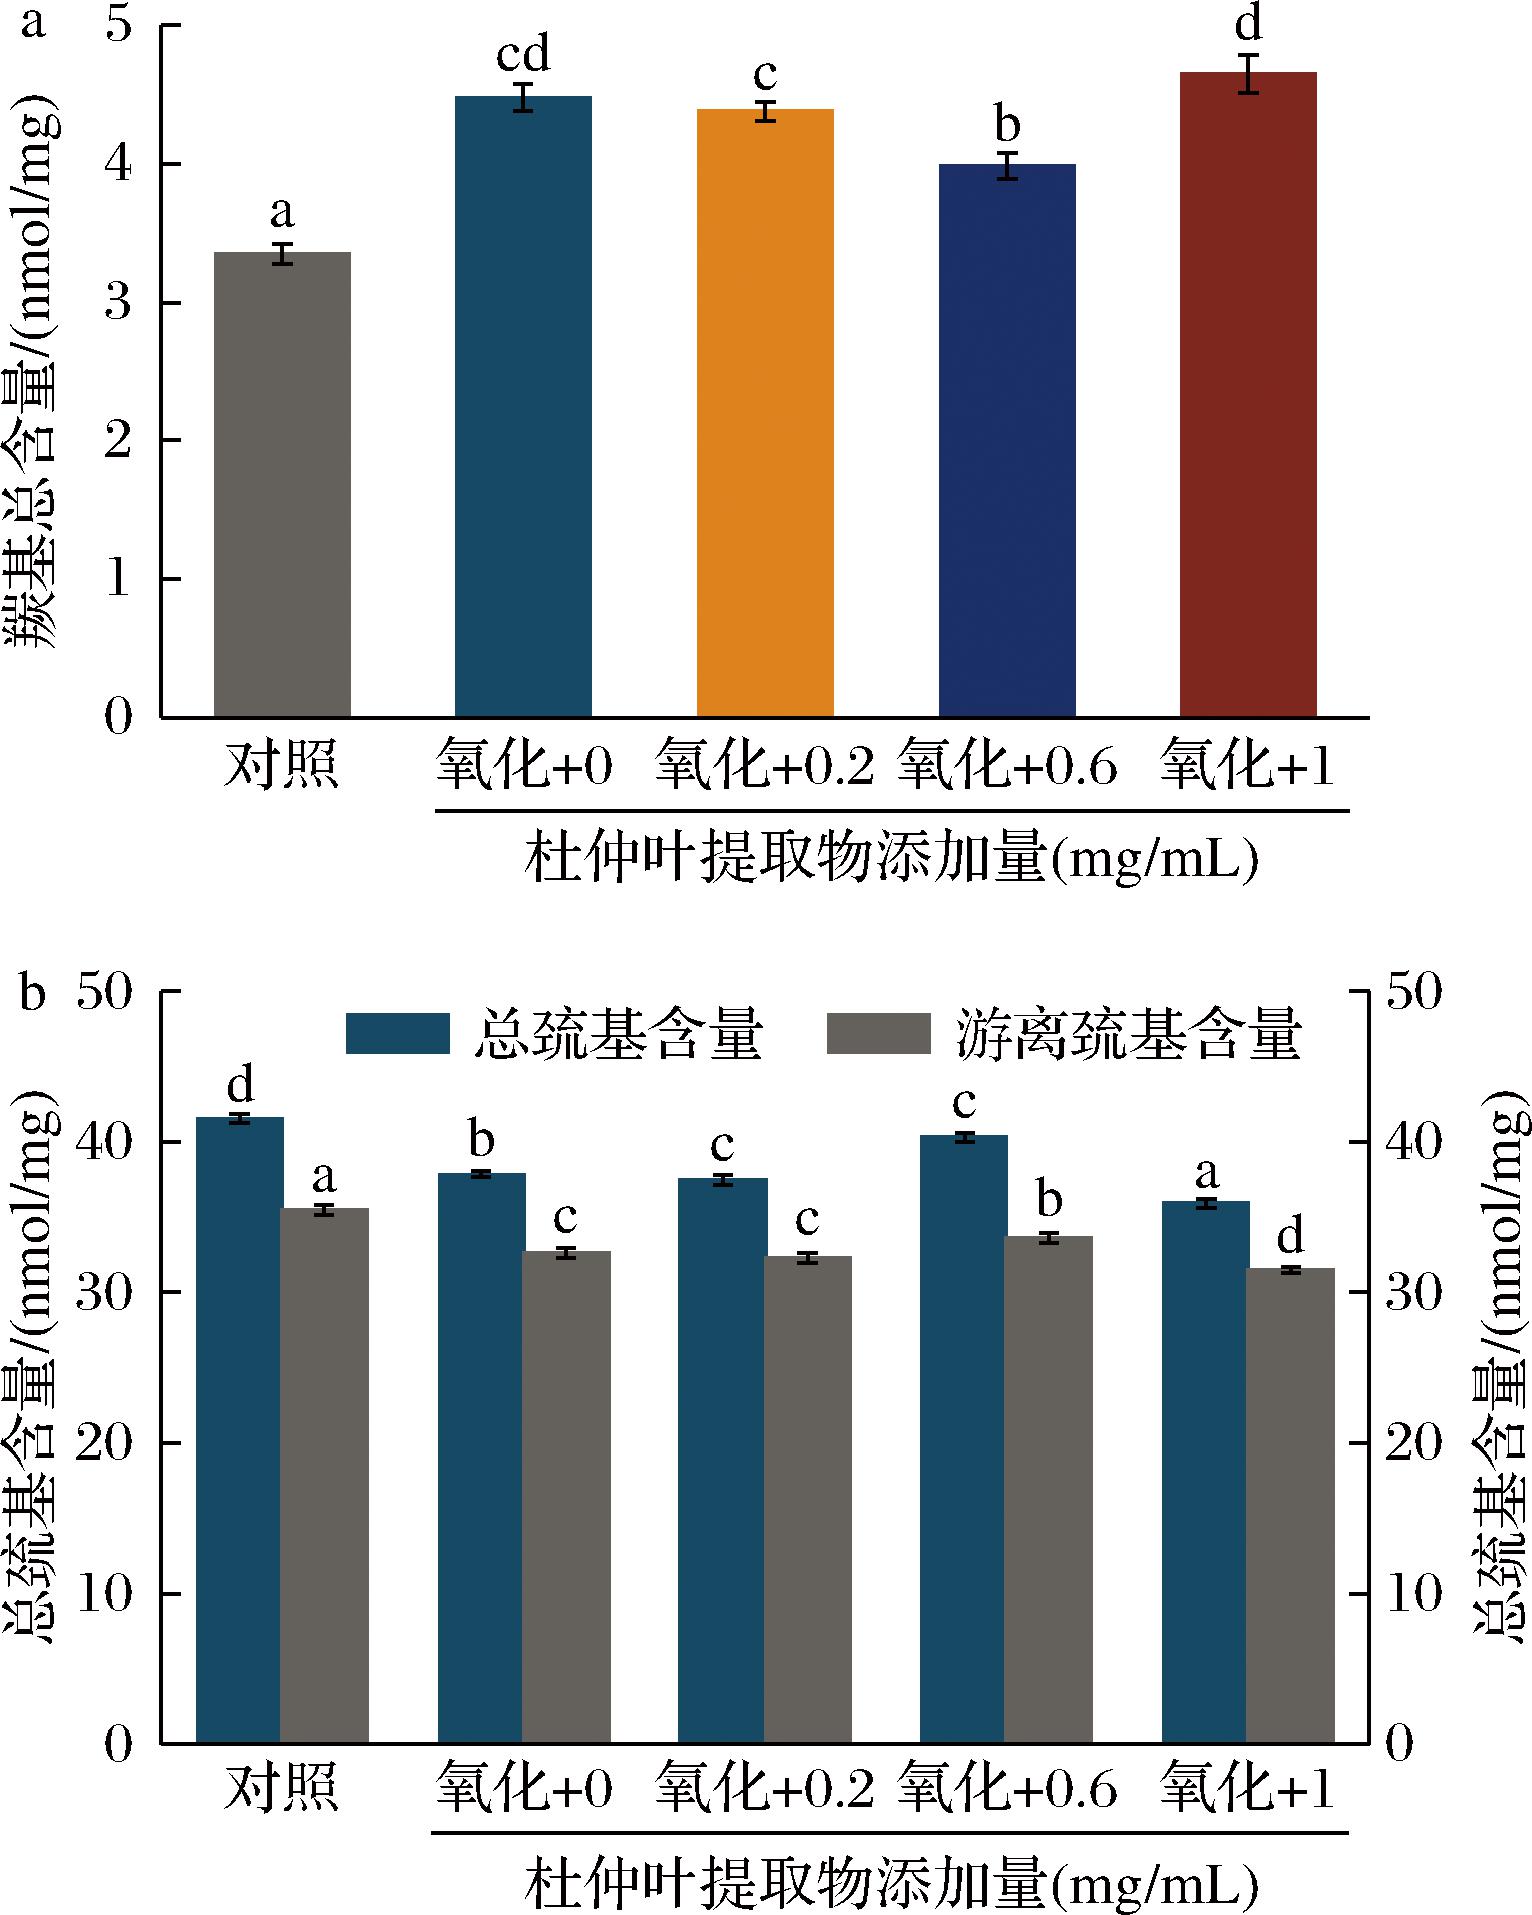
a-MPs羰基含量图;b-MPs巯基含量图
图2 杜仲叶提取物对氧化鸡肉肌原纤维蛋白羰基和巯基含量的影响
Fig.2 Effects of E.ulmoides leaf extract on carbonyl and sulfhydryl contents of oxidized chicken myofibrillar proteins
注:不同小写字母标注表示差异显著(P<0.05)(下同)。
2.3 EULE的添加对氧化MPs表面疏水性和内源性荧光色氨酸的影响
内源性色氨酸(Trp)荧光强度与表面疏水性是反映鸡肉MPs构象变化的关键敏感指标,前者体现疏水性氨基酸残基的暴露情况,后者展示Trp残基微环境的极性特性。如图3所示,空白对照组MPs的BPB结合量为211.5 μg,Trp荧光强度处于较高水平;经过氧化处理后,BPB结合量显著增加到216.62 μg(P<0.05),同时荧光强度显著下降,这或许是由于氧化破坏了MPs的二级和三级结构,导致内部疏水性残基暴露,并且Trp残基从蛋白内部疏水区域转移到亲水环境、微环境极性增强导致的,这和李玲等[20]在羟自由基氧化体系中发现的猪肉MPs内源色氨酸荧光强度下降的规律相符。EULE对这2个指标呈现剂量依赖性的双向调节:0.2 mg/mL EULE组的BPB结合量较氧化组略有减少,推测低浓度多酚通过疏水相互作用或者氢键结合了部分暴露的疏水位点,一定程度上遮蔽了疏水性;0.6 mg/mL EULE使BPB结合量回落至与空白组相当水平(P>0.05),荧光强度虽仍低于空白组但较氧化组有所回升,表明适量EULE有助于维持或部分恢复MPs的折叠构象,减少疏水残基的无序暴露,并在一定程度上稳定了Trp周围的微环境;而1 mg/mL EULE组的BPB结合量进一步显著增加到220.15 μg(P<0.05),同时荧光强度急剧淬灭,这可能是因为高浓度多酚通过共价或强非共价作用促使MPs形成了大量新的疏水界面,造成疏水性残基暴露增多,Trp残基被包埋于聚集体内部或者发生能量转移,共同表现为疏水性增强而荧光强度降低,此结果与该组疏水键占比异常升高的分子间作用力数据相互佐证,也与贾娜等[21]提出的过量多酚诱导蛋白构象重排、暴露更多疏水区域的结论以及Dai等[22]使用迷迭香酸降低肌球蛋白荧光强度的研究相一致。
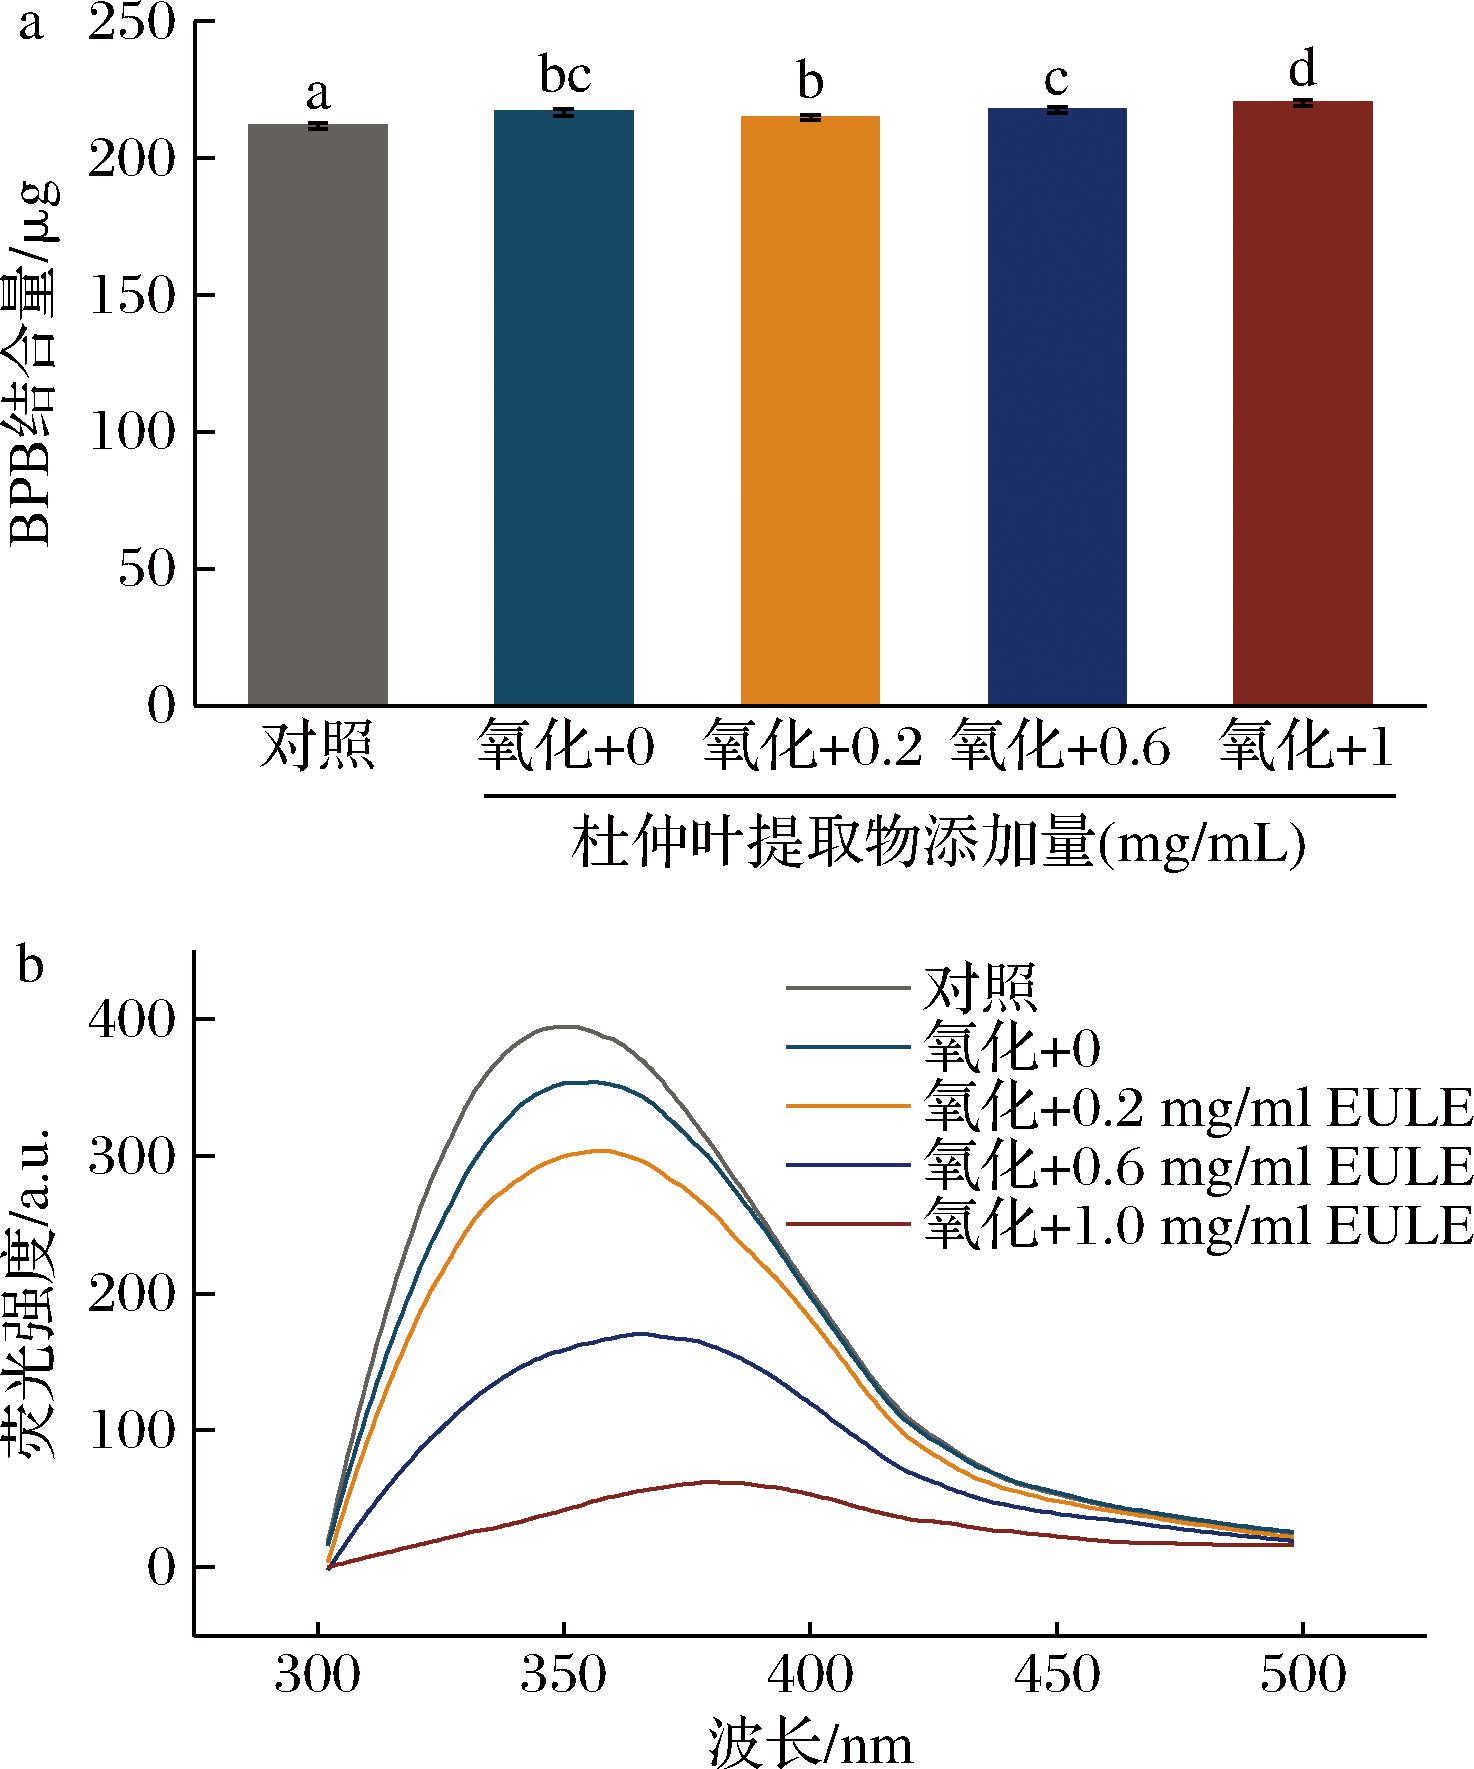
a-表面疏水性;b-内源性荧光色氨酸
图3 杜仲叶提取物对氧化鸡肉肌原纤维蛋白表面疏水性和内源性荧光色氨酸的影响
Fig.3 Effect of E.ulmoides leaf extract on hydrophobicity and endogenous fluorescent tryptophan of myofibrillar protein in oxidized chicken meat
2.4 EULE的添加对氧化MPs凝胶二级结构的影响
傅里叶变换红外光谱分析中,酰胺Ⅰ带(1 700~1 600 cm-1)与酰胺Ⅱ带(1 600~1 500 cm-1)特征吸收峰可反映分子内官能团振动特性,是蛋白质二级结构定性分析关键依据,其光谱位移及强度变化可表征二级结构动态演变。如图4-a所示,氧化处理后的MPs在3 500 cm-1附近宽频带及酰胺Ⅰ/Ⅱ带吸收强度明显下降,这与马思丽等[23]对牛肉MPs的氧化研究结果相符,其发现羟自由基氧化会引发蛋白结构解折叠,导致O—H/N—H、C O等官能团振动活性降低,进而引发二级结构改变。而1 700~1 600 cm-1处各处理组酰胺Ⅰ带峰形和位置的轻微变化,表明氧化处理和EULE的添加对MP二级结构存在调控作用。基于酰胺Ⅰ带去卷积分析结果(图4-b),各处理组MPs含α-螺旋、β-折叠、β-转角和无规则卷曲4种构象。与未氧化MPs相比,氧化处理后α-螺旋含量降低、无序结构比例增加,说明氧化使蛋白质从有序向无序转变,这与马文慧等[24]报道一致;该变化使部分色氨酸残基暴露,导致MPs荧光强度下降,印证结构紊乱。适量添加EULE可稳定MPs的α-螺旋结构,0.6 mg/mL EULE处理组中,α-螺旋含量提升,β-转角和无规则卷曲含量下降,表明适量EULE可能通过其抗氧化作用及与蛋白质的适度分子相互作用,有助于维持或恢复部分有序结构。1 mg/mL时,过量多酚使蛋白分子交联聚集,破坏α-螺旋构象,导致其含量下降、无序结构占比回升,这与李国昊等[25]报道的“高剂量决明子提取物引发 MPs 过度聚集、α-螺旋含量降低”现象一致,二级结构从有序向无序的转变,直接影响了蛋白质的溶解性及界面吸附能力,这为后续乳液功能的改变提供了结构层面的解释,该结构变化也与高浓度EULE导致MPs荧光强度显著降低的结果相呼应。
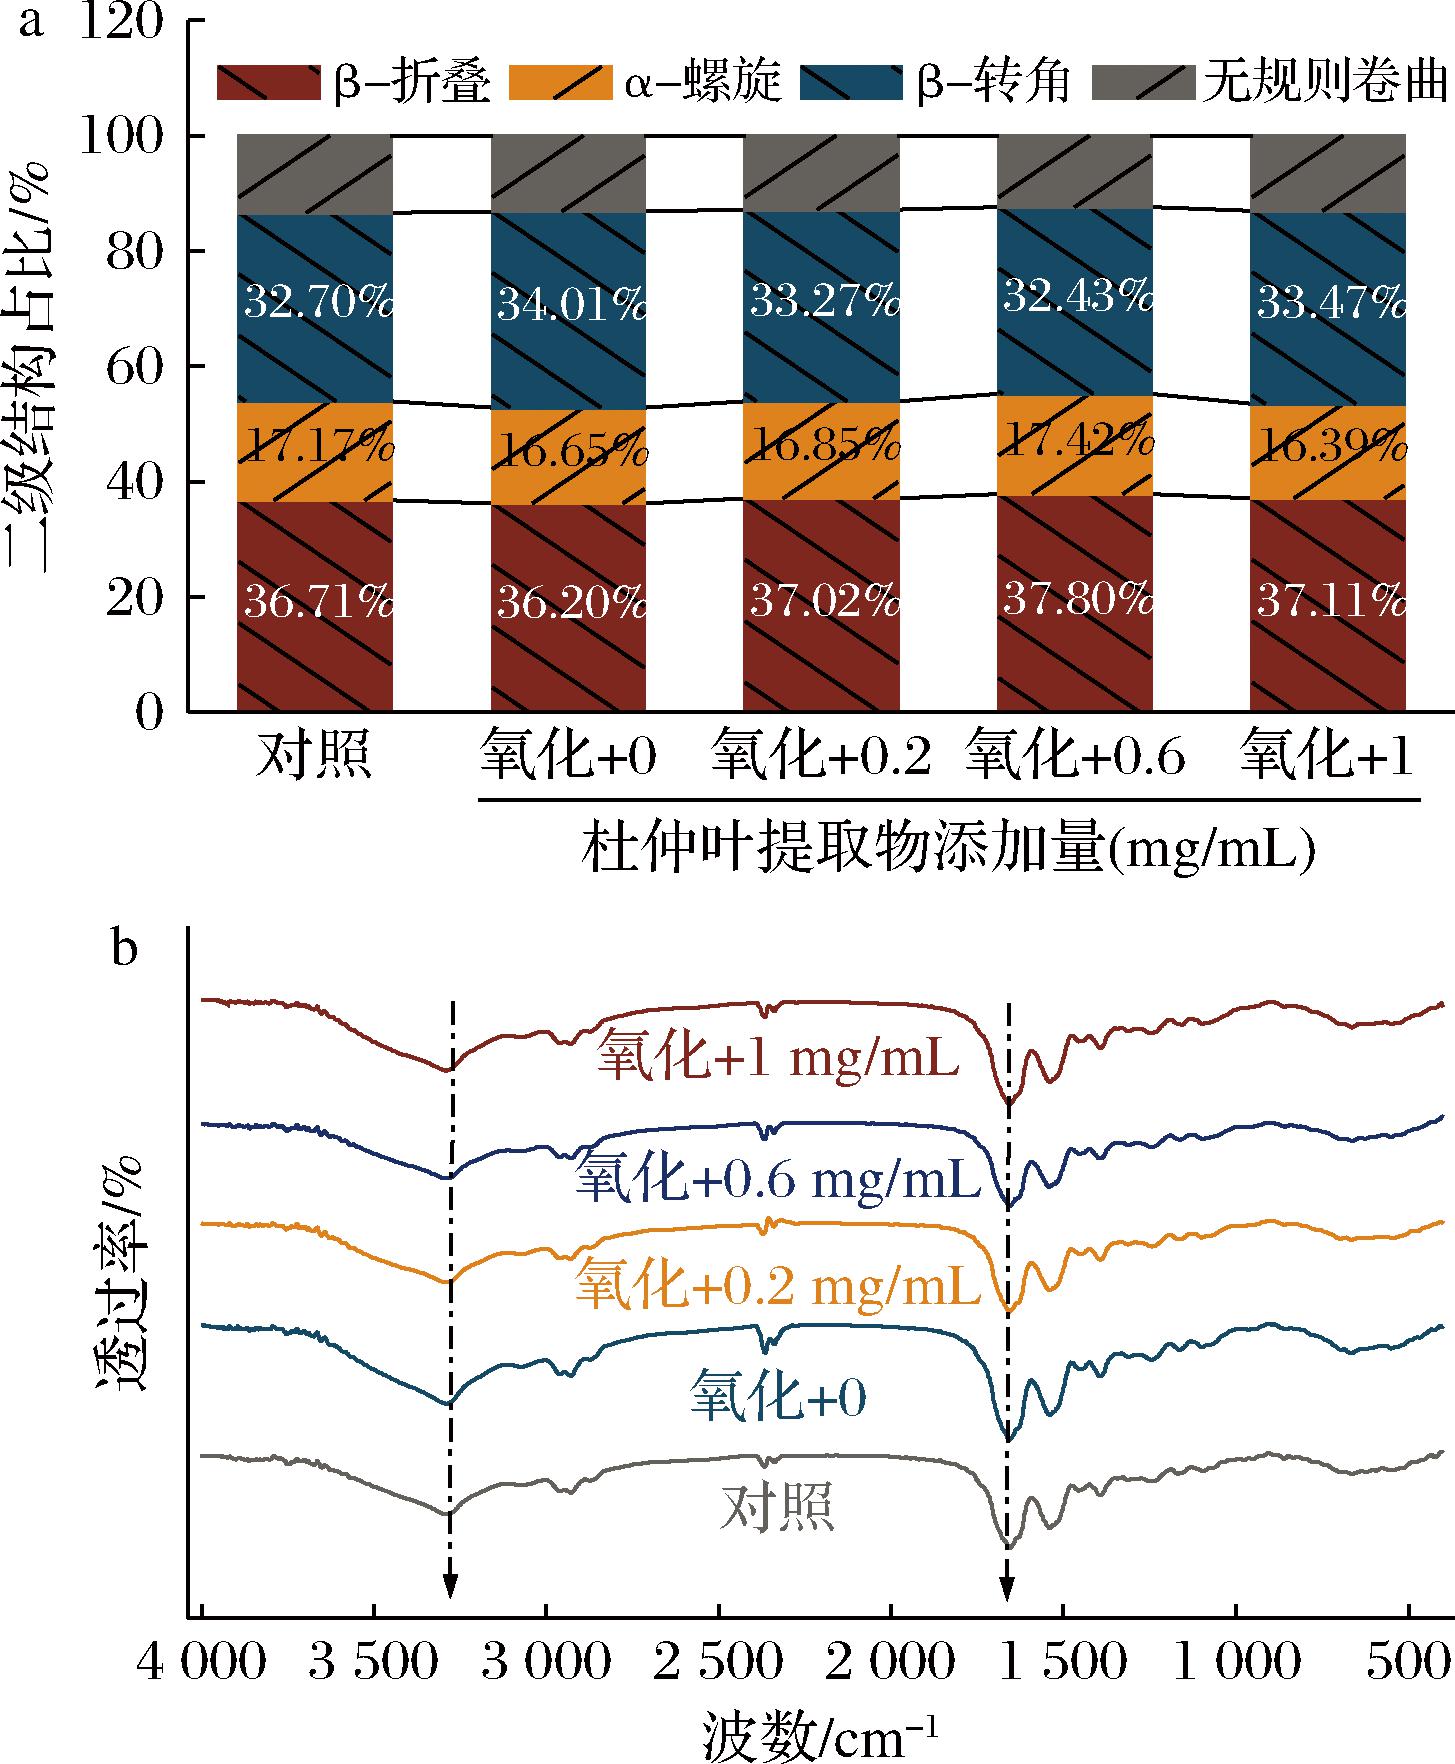
a-MPs凝胶二级结构偏移数据图;b-MPs凝胶二级结构占比数据图
图4 杜仲叶提取物对氧化鸡肉肌原纤维蛋白凝胶二级结构的影响
Fig.4 Effects of E.ulmoides leaf extract on the secondary structure of oxidized chicken myofibrillar protein gels
2.5 EULE的添加对氧化MPs凝胶分子间作用力的影响
分子间作用力的定量分析为理解结构变化提供了根本的化学力基础。如图5所示,MPs经氧化后,其凝胶网络中的分子间作用力分布发生显著改变:与空白对照组相比,疏水相互作用与非二硫共价键的占比显著升高,而氢键与离子键的比例则相应降低(P<0.05)。这一变化趋势与前述各项结构及功能指标的恶化结果相对应:疏水作用的增强是氧化导致蛋白质构象展开、内部疏水性残基暴露的直接体现,印证了表面疏水性的显著上升;非二硫共价键的增加,则与氧化引发的羰基含量升高及蛋白质不可逆聚集密切相关[17];同时,氢键网络的破坏直接关联于α-螺旋有序结构的减少,而离子键的减弱也一定程度解释了zeta电位绝对值下降及乳液静电稳定性降低的原因。EULE的添加呈现出关键的调控作用:0.6 mg/mL EULE有效逆转了氧化带来的破坏,疏水作用与非二硫共价键占比回降,氢键比例显著恢复。这表明该浓度EULE不仅通过抗氧化抑制了异常交联,其多酚分子还可能作为氢键供体/受体,参与并稳定了蛋白质的极性相互作用网络,实现了作用力网络的“修复性重构”,这与常海军等[12]关于“酚类物质通过氢键相互作用稳定蛋白质构象”的研究结论一致。然而,当EULE质量浓度增至1 mg/mL时,作用力网络再度恶化,疏水相互作用与非二硫共价键占比异常升高,这说明过量的酚类物质可能会发生自氧化,生成的高活性醌类中间体,会与蛋白质发生新的共价结合以形成非二硫交联;同时,强烈的非特异性疏水相互作用,会诱导蛋白质发生异常聚集与构象畸变,这与贾娜等[21]报道的“高剂量多酚引发蛋白质过度聚集并破坏功能”的机制一致。
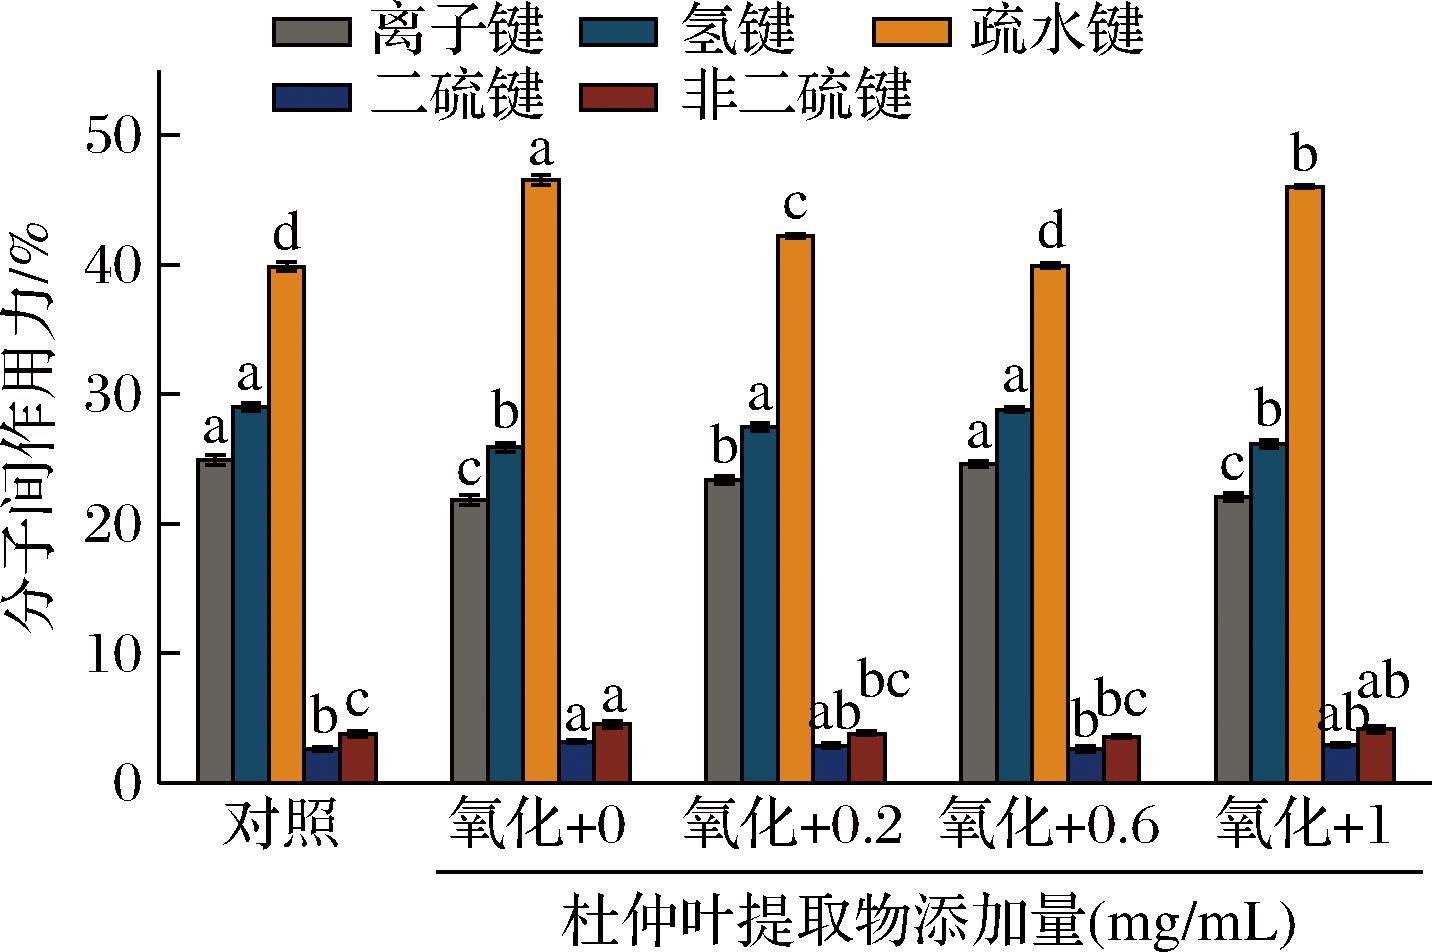
图5 杜仲叶提取物对氧化鸡肉肌原纤维蛋白凝胶分子间作用力的影响
Fig.5 Effects of E.ulmoides leaf extract on the intermolecular forces of oxidized chicken myofibrillar protein gels
2.6 EULE的添加对氧化MPs乳液粒径和zeta电位的影响
粒径与zeta电位通过界面电荷相互作用紧密关联,共同决定乳液液滴分散性与稳定性:zeta电位绝对值越大,液滴静电排斥力越强,乳液越稳定。如图6所示,空白对照组zeta电位绝对值约为11 mV,粒径分布较窄(D32和D43值较小),表明未氧化MPs可形成分散均匀的乳液体系;氧化处理后,zeta电位绝对值降至约9 mV(P<0.05),静电排斥力减弱,且MPs分子交联导致液滴聚集、粒径分布曲线显著移动,这与李学鹏等[26]的研究结论一致,氧化处理直接影响乳液的均一性与稳定性。不同浓度EULE呈现差异化调控效果:0.2 mg/mL组粒径与zeta电位无明显变化,调节作用较弱;0.6 mg/mL组粒径显著减小(D32=106.43、D43=10.49),同时zeta电位绝对值升至13.09 mV(P<0.05),这一方面得益于其对MPs结构的保护,使蛋白质能更有效地吸附并铺展在油-水界面,形成细小液滴。另一方面,EULE分子本身携带的负电性基团可能协同吸附在界面上,增加了液滴表面的净负电荷,从而通过增强静电排斥力显著提升了乳液的分散稳定性,这与Nuerjiang等[27]的研究结果一致;1 mg/mL组zeta电位绝对值降至9.5 mV(P<0.05),粒径再次增大,这是因为过量多酚与蛋白质的异常结合可能遮蔽了蛋白质表面的电荷位点,同时诱导蛋白质发生大尺度聚集,导致粒径增大和静电稳定性下降。这与熊杰等[28]报道的高浓度鼠曲草提取物破坏MPs胶体稳定性、促进聚集的结论一致。
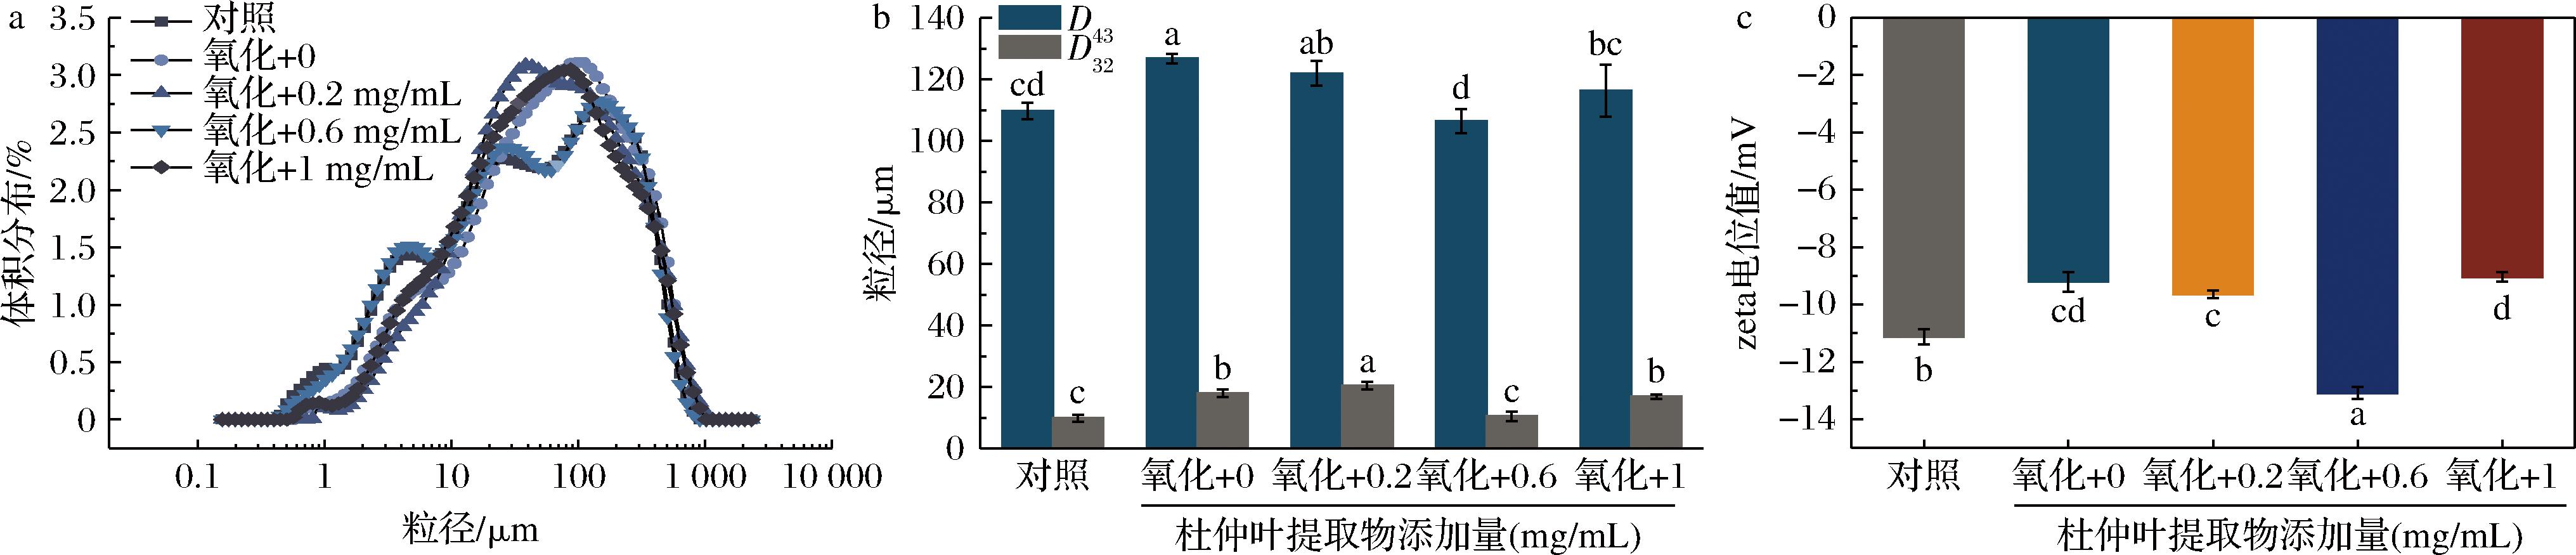
a-粒径趋势分布图;b-D43和D32值图;c-zeta电位图
图6 杜仲叶提取物对氧化鸡肉肌原纤维蛋白乳液粒径分布和Zeta电位的影响
Fig.6 Effects of E.ulmoides leaf extract on particle size distribution and zeta potential of emulsions stabilized by oxidized chicken myofibrillar proteins
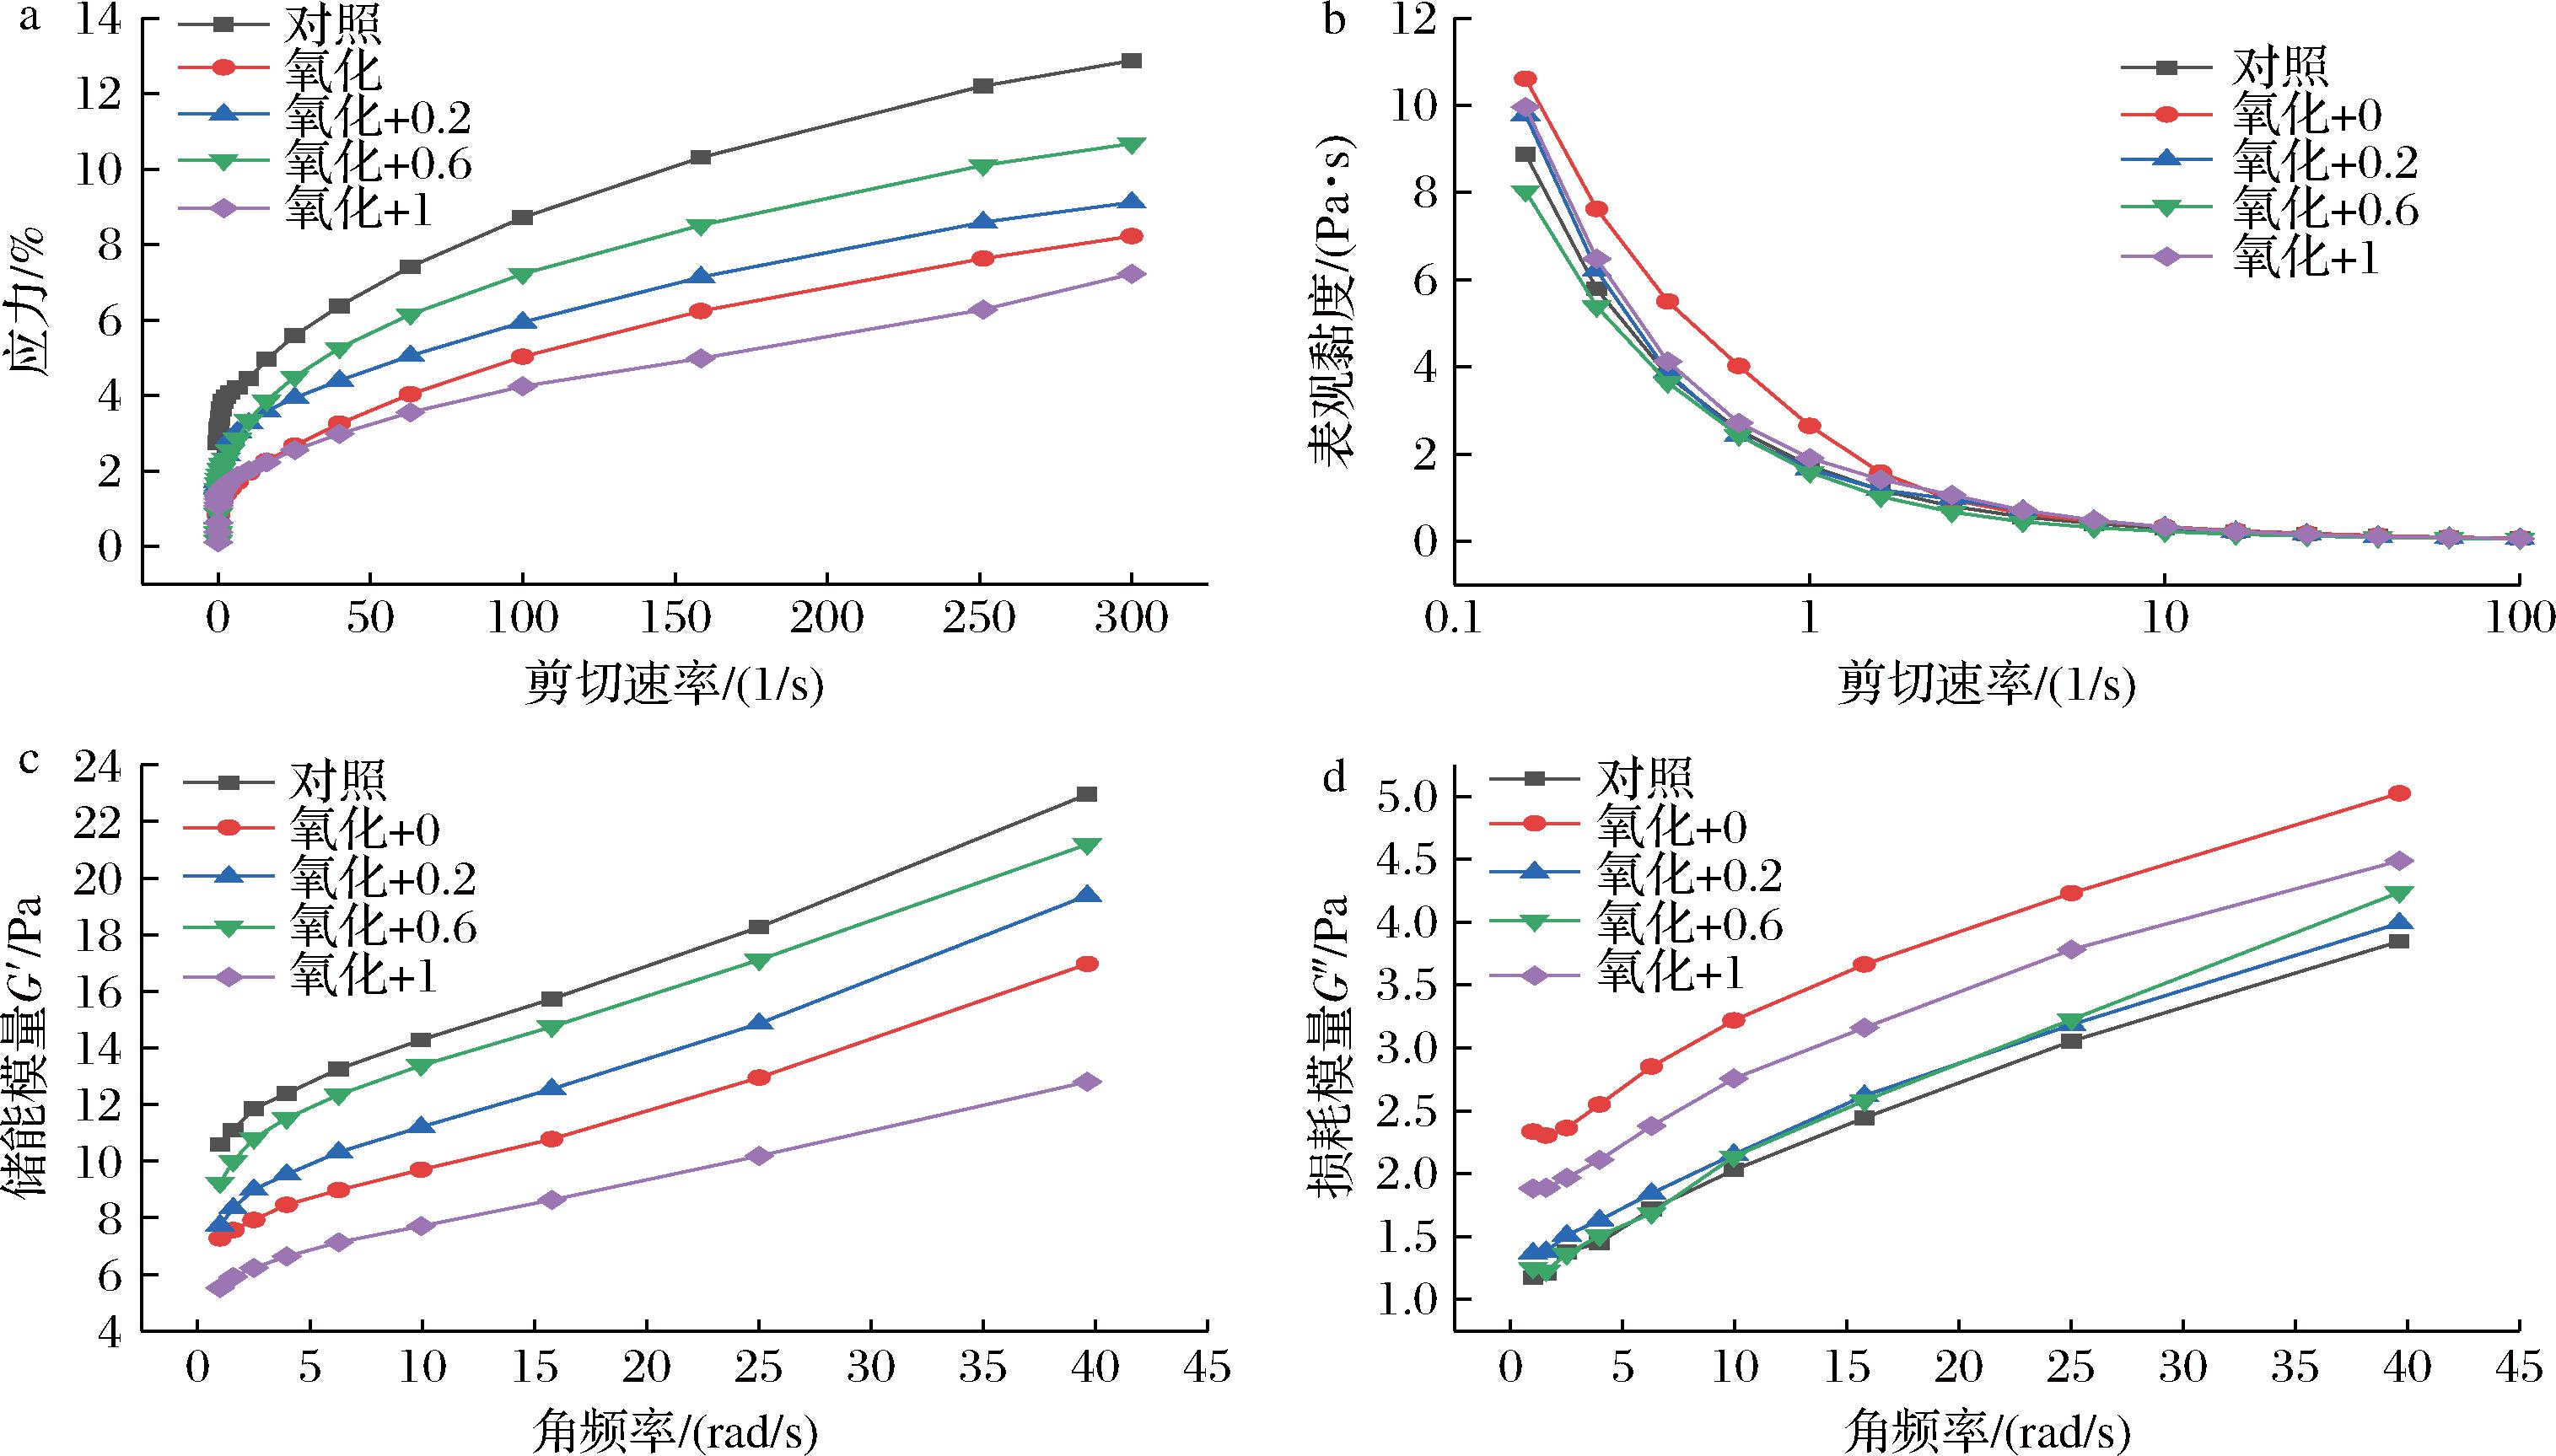
a-应力;b-表观黏度;c-储能模量;d-损耗模量
图7 杜仲叶提取物对氧化鸡肉肌原纤维蛋白乳液流变特性的影响
Fig.7 Effects of E.ulmoides leaf extract on the rheological properties of emulsions stabilized by oxidized chicken myofibrillar proteins
2.7 EULE的添加对氧化MPs乳液流变特性的影响
流变特性是表征乳液网络结构强度与稳定性的核心指标,剪切应力、表观黏度反映抗流动能力,储能模量(G′)与损耗模量(G″)体现黏弹特性。如图7所示,所有实验组乳液均呈现剪切稀化行为(表观黏度随剪切速率升高而降低),动态频率扫描中G′始终大于G″,表明乳液以弹性行为为主导,具备典型的凝胶特性。MPs经氧化处理后,氧化对照组的流变应力、表观黏度、G′及G″均显著低于空白对照组(P<0.05),说明氧化破坏蛋白结构与乳液网络,导致流变性能弱化,这与Sun等[29]提出的“氧化通过破坏蛋白结构与乳液网络降低流变性能”机制高度一致。添加EULE后,MPs乳液的4项流变学核心指标随EULE添加浓度呈现显著的“先升后降”剂量效应:中低剂量EULE处理组的指标水平均显著高于氧化对照组,且在0.6 mg/mL时达到峰值;这与其最优的粒径分布、最高的zeta电位、以及MPs分子本身健康的作用力网络密切相关。而当添加量增至1 mg/mL时,各项指标显著下降(P<0.05),这可能是因为蛋白质的过度聚集和界面性质的恶化,破坏了乳液网络的连续性与均一性,使其机械强度大大降低。这与Chen等[3]研究结果一致:适量丁香提取物可以提升流变性能;高剂量则促使蛋白过度聚集、破坏网络均匀性,导致流变性能下降。
2.8 EULE的添加对氧化MPs乳液乳化活性、乳化稳定性和贮存稳定性的影响
EAI、ESI与贮存稳定性是表征MPs乳液功能的核心指标,前者反映油-水界面初始吸附与膜构建能力,后者体现乳液在货架期内的相分离抗性。二者共同依赖于MPs构象完整性与界面膜的致密性,且呈现EULE浓度相关的协同调控特征。如图8所示,空白对照组MPs构象完整,EAI达1.12 m2/g、ESI为14.5%,乳化性能优良,初始乳液呈均匀浑浊状态(CI<2%);氧化处理后,MPs构象破坏、分子聚集导致界面膜疏松多孔,EAI降至0.82 m2/g、ESI降至8.8%(P<0.05),且4 ℃贮存6 h后水相大量析出(CI达9.2%)、12 h后几乎完全分层(CI为23%),乳化与贮存性能同步劣变。添加不同浓度EULE后,0.6 mg/mL处理组的改善效应最为显著:EAI回升至1.05 m2/g、ESI提高至13.0%(P<0.05),这既源于EULE的抗氧化作用维持了MPs的溶解性与伸展构象,使其快速吸附于油-水界面,也因多酚成分与MPs协同吸附增强了界面膜的机械强度;对应的贮存稳定性同步提升,4 ℃贮存6 h仍保持均一性、12 h后CI仅12.7%,此效应与Gong等[30]报道的“白藜芦醇通过清除自由基维持乳液网络稳定性”的机制类似,本质是界面膜初始致密性为长期抗聚结提供了结构基础。0.2 mg/mL EULE组的改善效果有限,仅能轻微缓解氧化损伤,无法维持乳液长期稳定;而1 mg/mL EULE组则出现功能劣变:EAI与ESI显著下降,一方面因高浓度下MPs扩散吸附能力降低,过量多酚还与MPs竞争界面位点、干扰膜排列;对应的贮存稳定性虽优于氧化组,但12 h分层程度高于0.6 mg/mL组,这可能与高浓度多酚通过异常疏水相互作用引发MPs非特异性聚集有关,过量多酚分子与蛋白疏水区域结合失衡,导致蛋白分子无序团聚,破坏界面膜完整性,此规律既与贾娜等[31]发现的“高浓度没食子酸通过过度交联破坏乳化膜稳定性”机制相符,也与前文粒径增大、zeta电位绝对值减小的结果相互印证。
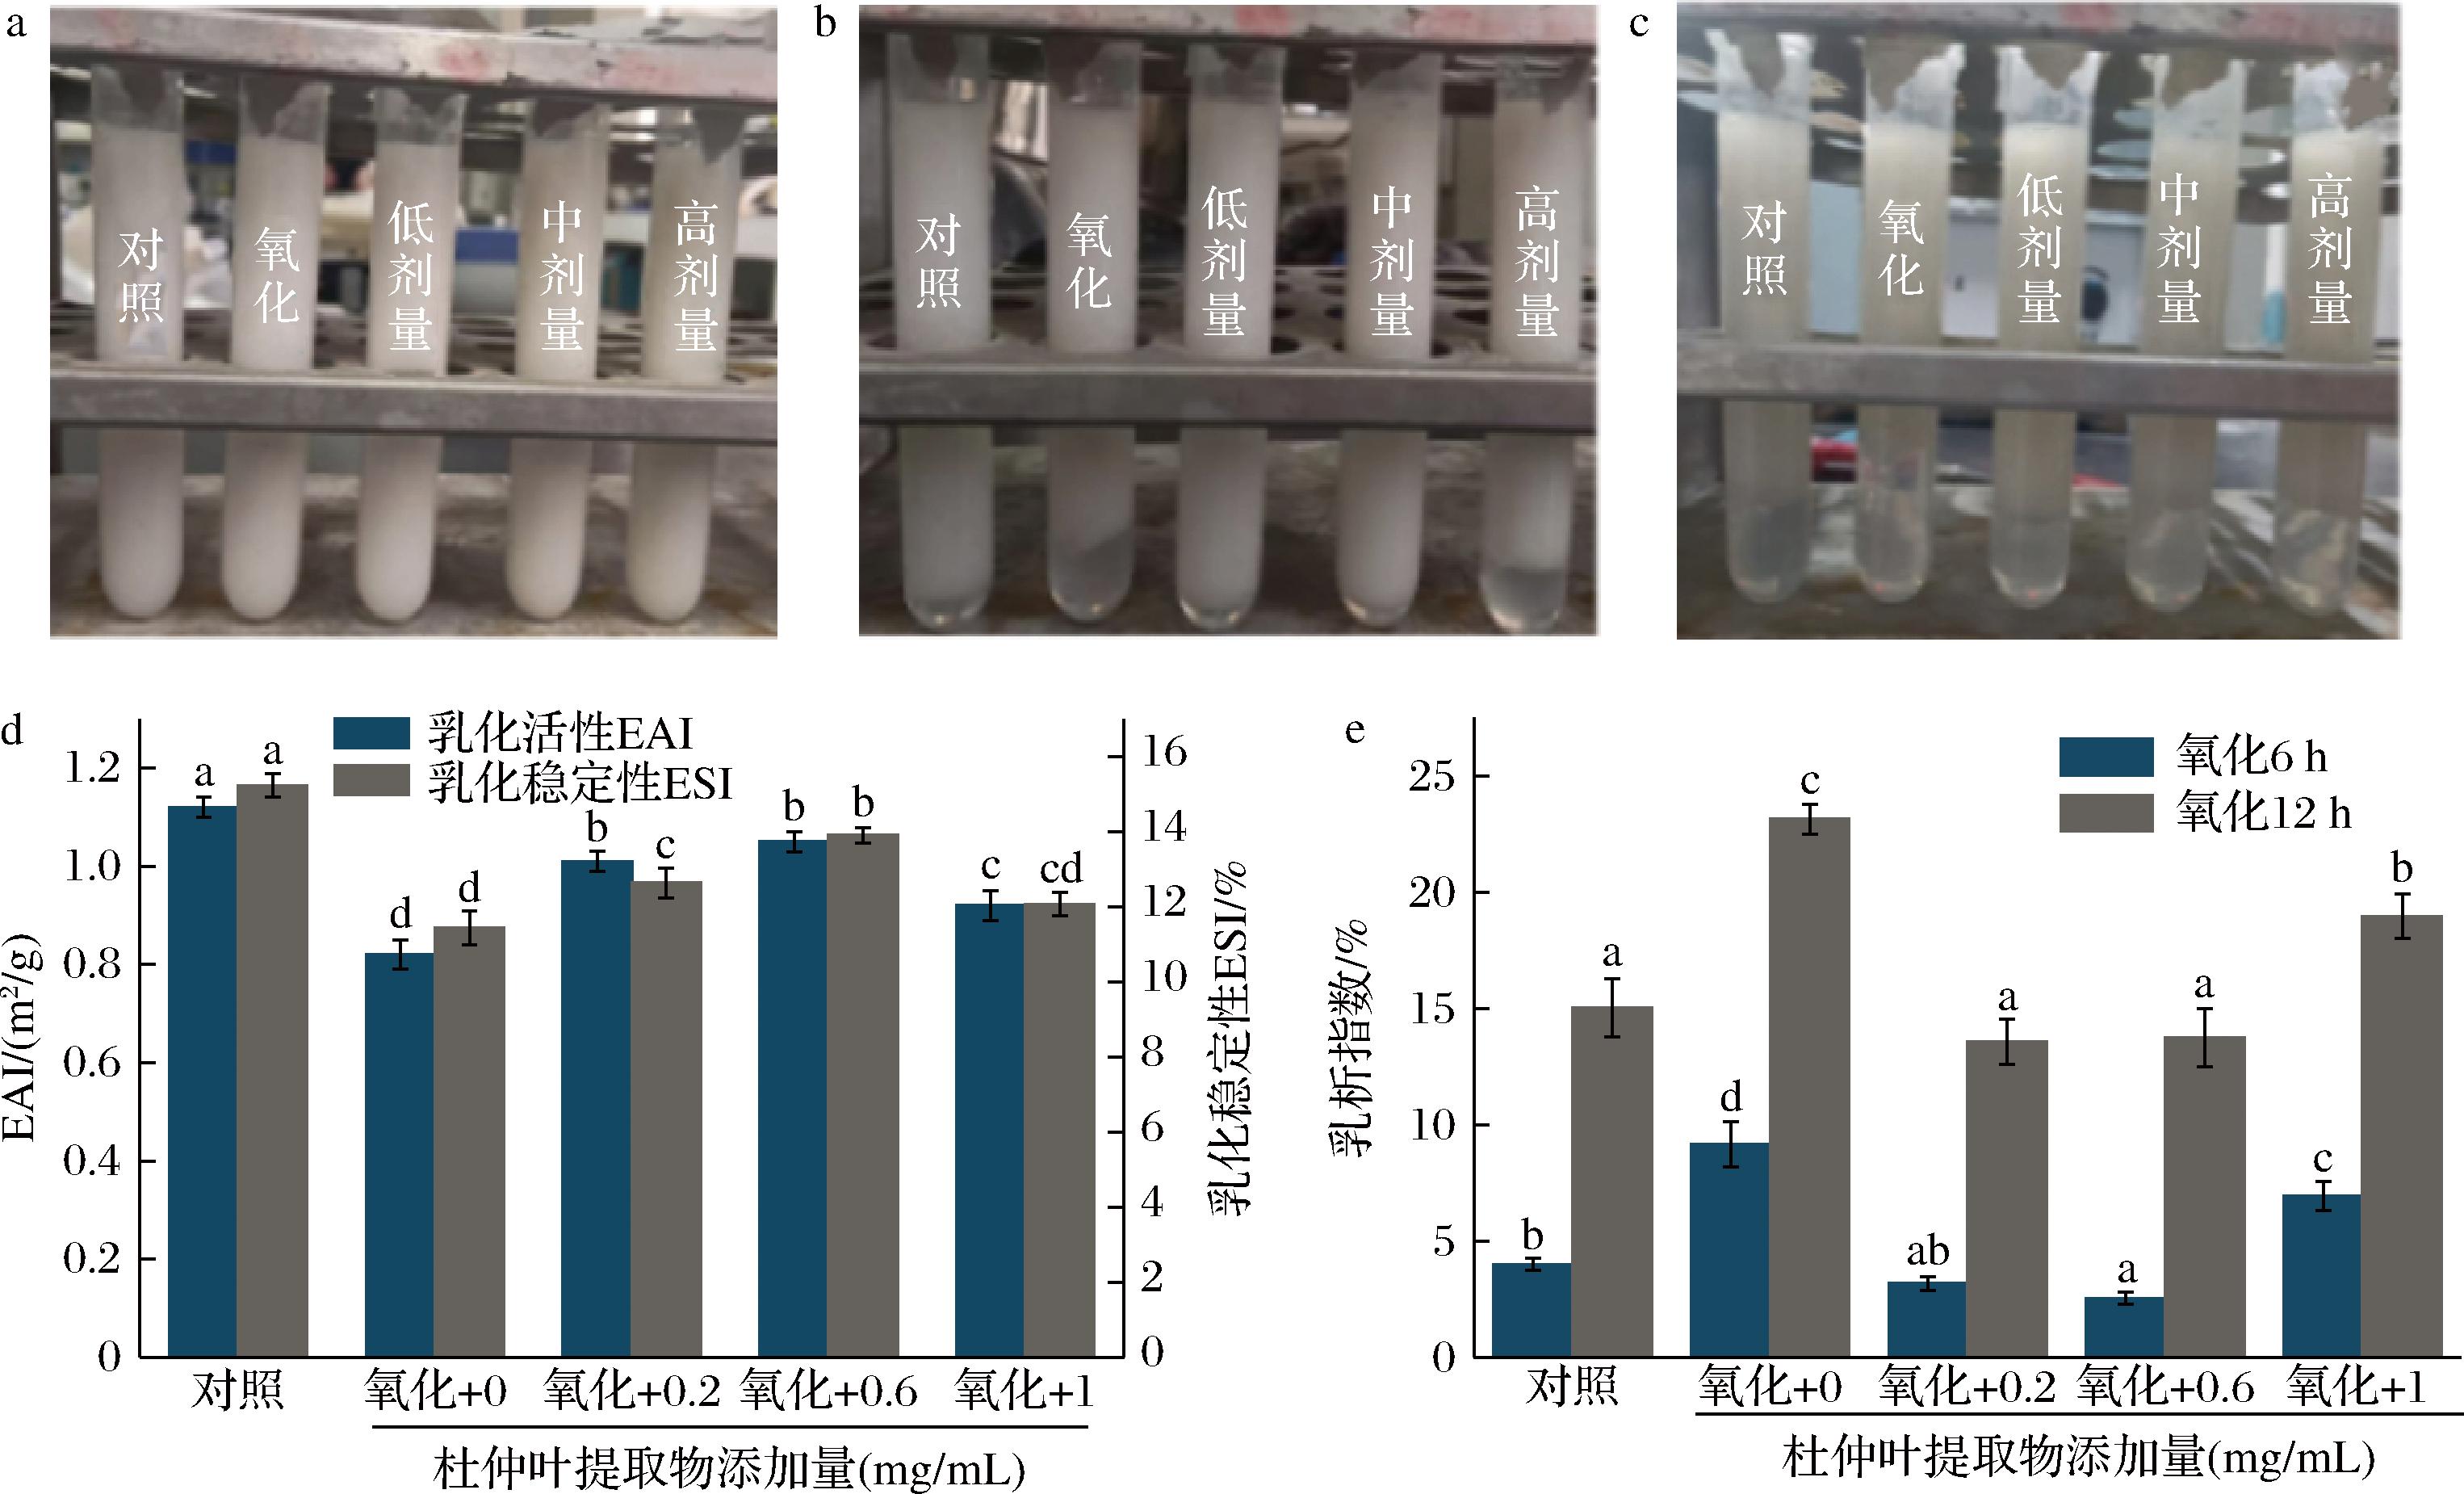
a-MPs乳液初始状态数据图;b-MPs乳液贮存6 h数据图;c-MPs乳液贮存12 h数据图;d-MPs乳化活性和乳化稳定性图;e-MPs乳液乳析指数图
图8 杜仲叶提取物对氧化鸡肉肌原纤维蛋白乳液乳化活性、乳化稳定性和贮存稳定性的影响
Fig.8 Effects of E.ulmoides leaf extract on emulsifying activity, emulsifying stability, and storage stability of emulsions stabilized by oxidized chicken myofibrillar proteins
3 结论与讨论
本研究发现,适量(0.6 mg/mL)的EULE能有效清除Fenton体系产生的ROS,保护MPs的结构完整性,减少羰基生成与巯基损失,维持α-螺旋有序构象,适度调控表面疏水性,优化分子间作用力网络。这些结构上的改善共同导致了其稳定乳液的功能提升:形成粒径更小、zeta电位更高的均匀液滴,从而显著增强乳液的乳化活性、乳化稳定性、流变性能及贮存稳定性。然而,过高质量浓度(1 mg/mL)的EULE可能因其多酚成分的自身特性或与蛋白的过度相互作用,诱导蛋白质发生异常聚集和交联,反而导致结构紊乱和所有乳化功能的恶化。本研究明确了EULE改善氧化MPs乳化特性的剂量效应与结构基础,为其作为天然抗氧化剂在肉糜制品中的精准应用提供了关键依据。
[1] Domínguez R, Pateiro M, Munekata P E S, et al. Protein oxidation in muscle foods: A comprehensive review[J]. Antioxidants, 2021, 11(1):60.
[2] Ni X X, Li M T, Huang Z W, et al. Study on the regulation of tea polyphenols on the structure and gel properties of myofibrillar protein from Neosalanx taihuensis[J]. Food Chemistry: X, 2025, 25:102243.
[3] Chen H S, Diao J J, Li Y Y, et al. The effectiveness of clove extracts in the inhibition of hydroxyl radical oxidation-induced structural and rheological changes in porcine myofibrillar protein[J]. Meat Science, 2016, 111:60-66.
[4] 王翔, 胡凤杨, 杨秋玲, 等. 杜仲叶的营养评价及体外抗氧化活性分析[J]. 食品工业科技, 2019, 40(21):290-299.Wang X, Hu F Y, Yang Q L, et al. Nutritional evaluation and antioxidant activity analysis in vitro of Eucommia ulmoides leaves[J]. Science and Technology of Food Industry, 2019, 40(21):290-299.
[5] 张梦杰, 韩四海, 王一博, 等. 氧化应激下杜仲叶提取物对鸡肉肌原纤维蛋白凝胶特性的改善作用研究[J]. 食品与发酵工业, 2026,52(7):251-259.Zhang M J, Han S H, Wang Y B, et al. Study on improvement effect of Eucommia ulmoides leaf extract on gel properties of chicken myofibrillar protein under oxidative stress[J]. Food and Fermentation Industries, 2026,52(7):251-259.
[6] 曹云刚. 植物多酚对肉蛋白氧化稳定性和功能特性的影响机理及应用[D]. 无锡: 江南大学, 2016.CAO Y G. Effect of plant-derived polyphenols on oxidative stability and functional properties of meat proteins: Mechanism and application[D]. Wuxi: Jiangnan University, 2016.
[7] 尉立刚, 孙文艳, 范三红, 等. 冷冻期间猪肌内脂肪氧化及肌纤维蛋白凝胶性能的差异分析[J]. 现代食品科技, 2022, 38(2):104-109.Yu L G, Sun W Y, Fan S H, et al. Analysis of differences in lipid oxidation and gel properties of porcine myofibrillar protein during frozen storage period[J]. Modern Food Science &Technology, 2022, 38(2):104-109.
[8] 常海军, 胡渝, 石源伟, 等. 鼠曲草提取物-焦磷酸钠对热诱导的猪肌原纤维蛋白凝胶特性的影响[J]. 重庆工商大学学报(自然科学版), 2026, 43(2): 10-17.Chang H J, Hu Y, Shi Y W, et al. Effects of Gnaphalium affine extract (GAE) and sodiumpyrophosphate(PP) on the gel properties of heat-induced pork myofibrillar proteins[J]. Journal of Chongqing Technology and Business University (Natural Science Edition), 2026, 43(2): 10-17.
[9] 陈腊梅, 唐善虎, 李思宁, 等. 丙二醛氧化对牦牛肉肌原纤维蛋白结构及功能特性的影响[J]. 食品科学, 2023, 44(8):46-54.Chen L M, Tang S H, Li S N, et al. Effect of malondialdehyde oxidation on the structure and functional properties of myofibrillar protein in yak meat[J]. Food Science, 2023, 44(8):46-54.
[10] 卢海立, 屈莎, 唐善虎, 等. 姜黄提取物对牦牛肌原纤维蛋白抗氧化性及凝胶特性的影响[J]. 现代食品科技, 2024, 40(9):288-295.Lu H L, Qu S, Tang S H, et al. Effects of turmeric extract on the antioxidant activity and gel properties of yak myofibrillar protein[J]. Modern Food Science &Technology, 2024, 40(9):288-295.
[11] 方海砚, 苑歆, 刘友明, 等. 羟自由基氧化对鲢鱼肌原纤维蛋白结构的影响[J]. 食品工业科技, 2020, 41(4):6-12.Fang H Y, Yuan X, Liu Y M, et al. Effect of hydroxyl radical oxidation on the structure of silver carp myofibrillar protein[J]. Science and Technology of Food Industry, 2020, 41(4):6-12.
[12] 常海军, 伯朝英, 周文斌, 等. 阿魏酸对·OH诱导的肌原纤维蛋白氧化及凝胶特性的影响[J]. 食品工业科技, 2023, 44(4):32-40.Chang H J, Bo Z Y, Zhou W B, et al. Effects of ferulic acid on oxidation and gel properties of meat myofibrillar protein induced by·OH[J]. Science and Technology of Food Industry, 2023, 44(4):32-40.
[13] Zhang Z L, Xiong Z Y, Lu S F, et al. Effects of oxidative modification on the functional, conformational and gelling properties of myofibrillar proteins from Culter alburnus[J]. International Journal of Biological Macromolecules, 2020, 162:1442-1452.
[14] Cao M M, Zhang X C, Zhu Y Q, et al. Enhancing the physicochemical performance of myofibrillar gels using Pickering emulsion fillers: Rheology, microstructure and stability[J]. Food Hydrocolloids, 2022, 128:107606.
[15] 石源伟, 常海军, 胡渝, 等. 马齿苋提取物对猪肉肌原纤维蛋白凝胶及乳化特性的影响[J]. 食品工业科技, 2024, 45(13):50-57.Shi Y W, Chang H J, Hu Y, et al. Effects of Portulaca oleracea extracts on gelation and emulsification properties of pork myofibrillar proteins[J]. Science and Technology of Food Industry, 2024, 45(13):50-57.
[16] Zhao X, Wu T, Xing T, et al. Rheological and physical properties of O/W protein emulsions stabilized by isoelectric solubilization/precipitation isolated protein: The underlying effects of varying protein concentrations[J]. Food Hydrocolloids, 2019, 95:580-589.
[17] 常海军, 胡渝, 石源伟, 等. 氧化条件下姜黄素对肌原纤维蛋白乳液特性的影响及其机制研究[J]. 食品与发酵工业, 2025, 51(8):195-202.Chang H J, Hu Y, Shi Y W, et al. Study on effect and mechanism of curcumin on emulsion properties of myofibrillar protein under oxidative condition[J]. Food and Fermentation Industries, 2025, 51(8):195-202.
[18] Utrera M, Estévez M. Oxidation of myofibrillar proteins and impaired functionality: Underlying mechanisms of the carbonylation pathway[J]. Journal of Agricultural and Food Chemistry, 2012, 60(32):8002-8011.
[19] Wang J Y, Wang Z X, Xing L J, et al. Effects of Toona sinensis seed polyphenols on pork myofibrillar protein oxidative modification, structure and physicochemical properties[J]. LWT, 2025, 222:117598.
[20] 李玲, 季慧, 段家玉. 绿原酸抑制猪肉肌原纤维蛋白氧化及NDEA生成的作用研究[J]. 食品工业科技, 2018, 39(8):29-33.Li L, Ji H, Duan J Y. The inhibition study of chlorogenic acid on the oxidation and N-nitrosodiethylamine (NDEA) formation in pork myofibrillar protein[J]. Science and Technology of Food Industry, 2018, 39(8):29-33.
[21] 贾娜, 林世文, 刘丹, 等. 芦丁诱导猪肉肌原纤维蛋白结构变化对蛋白凝胶特性的改善作用[J]. 食品科学, 2021, 42(8):67-73.Jia N, Lin S W, Liu D, et al. Improvement effects of structural changes of pork myofibrillar protein induced by rutin on its gel properties[J]. Food Science, 2021, 42(8):67-73.
[22] Dai H J, Chen X K, Peng L, et al. The mechanism of improved myosin gel properties by low dose rosmarinic acid addition during gel formation[J]. Food Hydrocolloids, 2020, 106:105869.
[23] 马思丽, 杨波, 李亚蕾, 等. 羟自由基氧化对牛肌原纤维蛋白结构与乳化性能的影响[J]. 食品科学, 2022, 43(6):8-16.Ma S L, Yang B, Li Y L, et al. Effect of hydroxyl radical oxidation on the structure and emulsifying properties of beef myofibrillar protein[J]. Food Science, 2022, 43(6):8-16.
[24] 马文慧, 邝吉卫, 李保玲, 等. 氧化条件下精氨酸对肌原纤维蛋白结构及凝胶性能的调控[J]. 食品科学, 2021, 42(24):24-31.Ma W H, Kuang J W, Li B L, et al. Effect of L-arg concentration on structural and gelling properties of myofibrillar protein under oxidative conditions[J]. Food Science, 2021, 42(24):24-31.
[25] 李国昊, 祖拉, 毕秀芳, 等. 决明子提取物对牦牛肉肌原纤维蛋白氧化稳定性的影响[J]. 食品科技, 2024, 49(7):122-128.Li G H, Zu L, Bi X F, et al. Effect of semen cassiae extract on oxidative stability of yak meat myofibrillar protein[J]. Food Science and Technology, 2024, 49(7):122-128.
[26] 李学鹏, 蔺博燕, 王金厢, 等. 羟自由基氧化对草鱼肌原纤维蛋白热聚集行为的影响[J]. 食品与发酵工业, 2020, 46(10):27-34.Li X P, Lin B Y, Wang J X, et al. Effect of hydroxyl radical oxidation on the thermal aggregation behavior of myofibrillar protein from grass carp (Ctenopharyngodon idellus)[J]. Food and Fermentation Industries, 2020, 46(10):27-34.
[27] Nuerjiang M, Li Y, Yue X X, et al. Analysis of inhibition of guava (Psidium guajava L.) leaf polyphenol on the protein oxidative aggregation of frozen chicken meatballs based on structural changes[J]. Food Research International, 2023, 164:112433.
[28] 熊杰, 伯朝英, 常海军, 等. 鼠曲草提取物对·OH诱导的肌原纤维蛋白氧化及结构的影响[J]. 食品工业科技, 2022, 43(3):72-80.Xiong J, Bo Z Y, Chang H J, et al. Effects of the extract of Gnaphalium affine on the oxidation and structure of myofibrillar protein induced by ·OH[J]. Science and Technology of Food Industry, 2022, 43(3):72-80.
[29] Sun W Z, Zhou F B, Sun D W, et al. Effect of oxidation on the emulsifying properties of myofibrillar proteins[J]. Food and Bioprocess Technology, 2013, 6(7):1703-1712.
[30] Gong T, Chen B, Hu C Y, et al. Resveratrol inhibits lipid and protein co-oxidation in sodium caseinate-walnut oil emulsions by reinforcing oil-water interface[J]. Food Research International, 2022, 158:111541.
[31] 贾娜, 刘丹, 宋立, 等. 没食子酸抑制猪肉肌原纤维蛋白氧化及其与蛋白的交联作用[J]. 中国食品学报, 2019, 19(1):12-19.Jia N, Liu D, Song L, et al. The inhibition effect of Gallic acid on oxidation of pork myofibrillar proteins and the crosslinking interaction between gallic acid and proteins[J]. Journal of Chinese Institute of Food Science and Technology, 2019, 19(1):12-19.