燕窝(edible bird’s nest, EBN)源于金丝燕(主要为Collocalia和Aerodramus)用黏稠的唾液和鸟类羽毛混合而成的鸟巢,主要的生物活性成分为唾液酸糖蛋白,具有抗病毒、免疫调节、学习记忆增强和神经退行性疾病改善等作用[1-2]。传统的干燕条原料需经长时间泡发、炖煮后才能食用,过程烦琐,为满足快节奏的消费市场,通过预煮和真空冷冻干燥后制备即食燕窝已成为行业趋势。复水比常用于反映产品的持水能力,结构完整性决定了产品质地与外观,而消化特性直接影响其营养利用效率,三者共同构成评估即食燕窝品质的关键指标[3-4]。热处理作为加工中的重要工序,通过影响蛋白质展开、变性、交联和胶化,显著影响蛋白凝胶稳定性与溶解性[5],是诱导即食燕窝品质发生质变的根本原因。
燕窝富含的唾液酸化黏蛋白糖蛋白表面共价连接了大量含有羟基(—OH)的寡糖链,比单纯蛋白更加亲水[6-7]。煮沸是燕窝最广泛的热加工方式,其操作简单、成本低廉,沸腾时间会显著影响燕窝的质地、外观以及氨基酸和蛋白质的特征[6, 8]。适度加热的条件下燕窝蛋白分子展开,水分结合能力增强,构成三维多孔网络结构渗透吸水,能够形成卓越的水-蛋白凝胶体系[9],从而获得良好的涨发率和质地;过度加热则导致燕窝从黏弹性固体凝胶态不可逆解聚为液体溶胶态,该相转变称为凝胶-溶胶转变(gel-sol transition)[10],也就是俗称的燕窝“化水”现象,直接导致质地与外观劣变、持水能力下降。因此,热处理既要保证燕窝达到充分吸水的食用状态,又要防止过度破坏天然结构。目前,尚无针对燕窝动态“化水”过程的具体研究,明确炖煮过程中燕窝基质的变化,并确定合适的热处理时间对燕窝类凝胶食品的开发至关重要。此外,热处理介导的蛋白质去折叠程度影响了消化酶结合位点的暴露水平,完整的蛋白凝胶结构可通过限制酶与底物的接触调控营养成分的释放,而结构预降解则可能改变蛋白消化特性,损害产品营养利用效率[11-12]。根据Kong等[13]的研究,肠道中胰蛋白酶对燕窝蛋白质影响较小。因此,本研究通过体外模拟胃消化揭示凝胶-溶胶转变过程对即食燕窝品质的影响,并评估其对胃排空的潜在影响。
当前国内外研究多聚焦于燕窝生物活性成分的提取及功能评价,对结构与品质的关注较少。本研究旨在阐明燕窝在热处理后凝胶-溶胶转变的动态过程及其对即食燕窝品质的影响,重点探讨结构演变与产品复水性能及消化特性之间的关系。通过监测过程中炖煮液的浑浊度、营养组成以及固形物的涨发率、二级结构变化等,展示热处理与燕窝凝胶结构之间的联系,结合模拟胃消化结果,评估了热诱导相变对即食燕窝产品消化特性的影响,为改善燕窝食用品质与促进市场发展提供理论指导。
1 材料与方法
1.1 材料与试剂
燕窝原料,广州市天健贸易有限公司,原产地马来西亚,经人工挑毛、清洁处理并去除杂质,样品呈自然米黄色的完整条状,按照供应商企业标准判定为白燕条,储存于25 ℃,所有实验均采用同一批次原料;生物特级纯胃蛋白酶(450 U/mg),上海泰坦科技股份有限公司;考马斯亮蓝G-250染色液、牛血清白蛋白标准品(5 mg/mL),上海碧云天生物技术有限公司;10~250 kDa与25~300 kDa标准预染蛋白marker,生工生物工程(上海)股份有限公司;所有其他化学品均为分析级及以上,中国上海国药化学试剂有限公司,超纯水电导率为0.014 μS/cm。
1.2 仪器与设备
Freezone冷冻干燥机,美国Labconco公司;Agilent 1260高效液相色谱仪,美国安捷伦科技公司;Epoch酶标仪,美国Bio Tek公司;日立F-7000荧光分光光度计,上海瑞第电子科技有限公司;iS50傅里叶变换红外光谱仪(Fourier transform infrared spectrometer, FTIR),美国赛默飞世尔科技公司;TA.XT plus100物性分析仪,英国Stable Micro Systems公司;SU8220冷场发射扫描电子显微镜(scanning electron microscope, SEM),日本日立公司;SHZ-B水浴恒温振荡器,常州诺基仪器有限公司;Gel DocXR+凝胶成像仪,美国Biorad公司。
1.3 实验方法
1.3.1 燕窝基本成分的测定
采用凯氏定氮法测定燕窝原料中粗蛋白含量,参考GB 31614.1—2023《食品安全国家标准 食品中唾液酸的测定》测定唾液酸含量,参考GB 5009.3—2016《食品安全国家标准 食品中水分的测定》测定水分含量。
1.3.2 即食干制燕窝样品的制备
使用超纯水在50 ℃下水浴保温3 h泡发干燕条,固液比为1∶100(g∶mL)。将浸泡后燕窝取出沥干表面水分,按湿重计,以料液比1∶3(g∶mL)加入超纯水至陶瓷炖盅中,模拟家庭炖煮条件,在常压下分别沸水炖煮0、5、10、15、20、25、30、40、60、90、120 min,全过程采用插入式热电偶温度计监测炖煮温度(98±2 ℃)。沥出燕窝固形物进行真空冷冻干燥,得到即食干制燕窝样品;沥干过程中滤出的液体为炖煮液,收集并储存在-20 ℃冰箱中,使用前在4 ℃下解冻。
1.3.3 炖煮后燕窝涨发率、浑浊度、pH值测定
1.3.3.1 涨发率测定
参考钱楠等[14]的方法并稍作调整,对不同炖煮时间处理后的燕窝进行涨发倍数测定。记录炖煮前燕窝样品的初始质量(mA, g),经过不同时间炖煮后用40目不锈钢网筛将固形物迅速沥出,沥水5 min后称重,测定每个样品的最终质量(mB, g)。使用公式(1)计算涨发率:
涨发率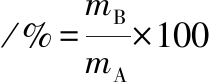
(1)
1.3.3.2 浑浊度和pH值测定
浑浊度测定参考Du等[15]的方法并稍作调整。取不同时间炖煮后沥出的燕窝炖煮液,冷却至25 ℃,涡旋振荡10 s,测定pH值和600 nm处的吸光度值,空白对照为超纯水。
1.3.4 氨基酸成分分析
量取4 mL炖煮液样品于高温水解管中,加入4 mL浓盐酸,用N2封管3 min后120 ℃高温水解22 h。待冷却后转移至25 mL具塞比色管,加入10 mol/L NaOH溶液中和,用超纯水定容至刻度线,滤纸过滤后10 000 r/min离心10 min,过0.22 μm水系膜后取上清液测定。随后采用高效液相色谱测定氨基酸组成,炖煮液中氨基酸总量以mg/L表示。
1.3.5 蛋白含量测定
将燕窝炖煮液以10 000 r/min离心10 min,取上清液测定蛋白含量。将牛血清白蛋白标准品配制成0、0.125、0.250、0.500、0.750、1.000和1.500 mg/mL梯度浓度溶液,各取5 μL,与250 μL考马斯亮蓝G-250染色液混合。5 min后测定595 nm处的吸光值,分别以吸光值和蛋白含量为纵坐标和横坐标作标准曲线。取等体积炖煮液样品重复上述操作测定A595值,在标准曲线上计算出蛋白质含量。
1.3.6 SDS-PAGE
参照Guo等[16]的测定方法并稍作调整。将不同炖煮时间的燕窝炖煮液10 000 r/min离心10 min,取上清液与5×Laemmli缓冲液[10% SDS(体积分数),0.5 mol/L Tris-HCl,5% β-巯基乙醇(体积分数),50%甘油(体积分数),0.5 g/L溴酚蓝]以4∶1的体积比混合。95 ℃加热5 min,冷却后10 000 r/min离心10 min。取上清液(蛋白质上样量约为10 μg)在SDS-PAGE小型凝胶(5%浓缩胶,6%分离胶,体积分数)上分离1.5 h,浓缩电压80 V,分离电压120 V。电泳结束后,用1 mg/mL考马斯亮蓝R-250染色液(甲醇∶冰醋酸∶蒸馏水=2∶1∶2,体积比)完全浸没电泳胶,染色25 min。用脱色液(甲醇∶冰醋酸∶蒸馏水=2∶1∶2,体积比)反复脱色至背景透明,通过Bio-Rad全自动凝胶成像仪分析结果。
1.3.7 内源荧光光谱
在25 ℃下进行燕窝炖煮液中溶出蛋白的内源荧光光谱检测。所有样品均使用超纯水稀释至蛋白质浓度0.1 mg/mL。样品激发波长为280 nm,发射光谱范围在300~500 nm,激发和发射均保持恒定狭缝宽度5 nm,扫描速度为300 nm/min。
1.3.8 FTIR分析
使用配备衰减全反射(attenuated total reflection,ATR)配件的FTIR仪收集放置在ATR晶体上的冻干燕窝粉末的光谱。光谱扫描范围设定在4 000~400 cm-1,用4 cm-1的分辨率扫描32次。使用Omnic 9.2软件对红外光谱进行基线校正和平滑处理。使用PeakFit 4.12软件对酰胺Ⅰ带区域(1 600~1 700 cm-1)的二阶导数光谱进行拟合,以分析二级结构的含量变化。
1.3.9 复水实验
将一定质量(m0)的即食干制燕窝样品浸泡在100 ℃的热水中5 min,然后置于40目不锈钢网筛上过滤。每隔5 min,用纸巾迅速吸干网筛底部水分4~5次,直至5 min内网筛底部无明显水分渗出。网筛上保留的固形物质量记为m1,复水比按公式(2)计算:
复水比
(2)
1.3.10 复水燕窝硬度的测定
将过滤后的燕窝均匀地在皿中平铺成相同的厚度,测定参数为:测试前探头速度2 mm/s;测试中探头速度1 mm/s;测试后探头速度2 mm/s;测试距离20 mm,触发力5 g;压缩比50%;2次测定间隔时间5 s;探头类型为P/36R,各样品至少测定3次。
1.3.11 冻干燕窝SEM观察
在4 ℃下,使用含有2.5%戊二醛溶液(体积分数)的磷酸盐缓冲液(0.1 mol/L,pH 7.2)固定复水、过滤后的燕窝样品24 h,再使用磷酸盐缓冲液洗涤样品3次。将样品依次浸泡于30%、50%、70%、90%和100%,均为体积分数的乙醇溶液中(每次15 min),梯度脱除水分,再使用真空冷冻干燥机干燥24 h。对制样后的燕窝样品进行喷金处理,使用放大倍数100×观察冻干再复水燕窝的微观结构。
1.3.12 模拟胃消化模型
将复水后的燕窝与提前配制好的15.0 mL模拟胃液(含6.9 mmol/L KCl,0.9 mmol/L KH2PO4,25 mmol/L NaHCO3,47.2 mmol/L NaCl,0.1 mmol/L MgCl2,0.5 mmol/L (NH4)2CO3,0.15 mmol/L CaCl2)于50 mL离心管内混合。用盐酸溶液调节pH值至3.0±0.2,内置转子,加入胃蛋白酶使体系酶活力为2 000 U/mL,于37 ℃恒温水浴中120 r/min搅拌反应2 h,分析30、60、90、120 min的消化情况。每个时间点均为独立的消化离心管,每隔0.5 h依次煮沸相应时间的离心管以灭活酶。
1.3.12.1 蛋白质释放量测定
取不同消化时间的上清液,测定其中蛋白质含量,方法同1.3.5节。
1.3.12.2 固形物残留率
消化结束后,将未消化完全的燕窝10 000 r/min离心10 min,将沉淀进行真空冷冻干燥,以收集残留固形物,固形物残留率按公式(3)计算:
固形物残留率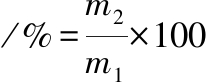
(3)
式中:m1,复水后的燕窝固形物质量,g;m2,残留固形物质量,g。
1.3.12.3 消化后蛋白SDS-PAGE分析
取消化后样品上清液,10 000 r/min离心10 min。使用0.1 mol/L的NaOH溶液调节pH值至6.8,电泳方法同1.3.6节所述,采用10%(体积分数)的分离胶。
1.4 数据处理
采用Origin 2021软件作图,使用SPSS Statistics 24.0软件对数据进行单因素方差分析(ANOVA),实验数据组间以Duncan多重比较法(P<0.05)进行差异显著性分析,处理数据以“平均值±标准差”表示,所有实验至少重复3次。
2 结果与分析
2.1 涨发率、浑浊度和pH值
燕窝原料基本成分为:蛋白质含量60.77%,唾液酸含量12.52%,水分含量7.31%。该结果与现有研究报道范围基本一致[1, 17],表明所选原料具有代表性。
涨发率的变化直接反映了蛋白凝胶网络结构锁住水分能力的大小,常用于评价水产品及食用胶体的质构特性[15]。如图1所示,随炖煮时间延长,燕窝的涨发率呈现先快速上升后持续下降的趋势,在25 min时达到峰值(241.38%)。热力作用诱导燕窝蛋白链舒展并暴露大量亲水基团结合位点[6],炖煮前期,燕窝的条状致密结构打开,形成初步的毛细通道,促进水分的渗透和吸收。先前的研究表明,过度的热处理导致蛋白凝胶网络结构崩塌[18],30 min起,部分固形物溶解于炖煮液中,涨发率持续下降,出现“化水”现象,导致沥出的燕窝固体质量降低。相关研究表明,蛋白质溶液的浊度变化直观体现了蛋白质的聚集程度,600 nm处的吸光度值常用于间接表征液体中蛋白质、多糖等大分子物质的溶出与聚集状态[15, 18]。由图1所示,0~120 min炖煮液的浑浊度持续且明显上升,表明液体中不可溶的大颗粒物增加,炖煮液不再澄清透明。此外,炖煮过程中游离氢离子和寡肽氨基酸等降解产物含量增加,可能导致炖煮液的pH值随炖煮时间的延长呈现轻微下降的趋势(图1),这与Joung等[19]对鳀鱼露发酵的研究结果类似。
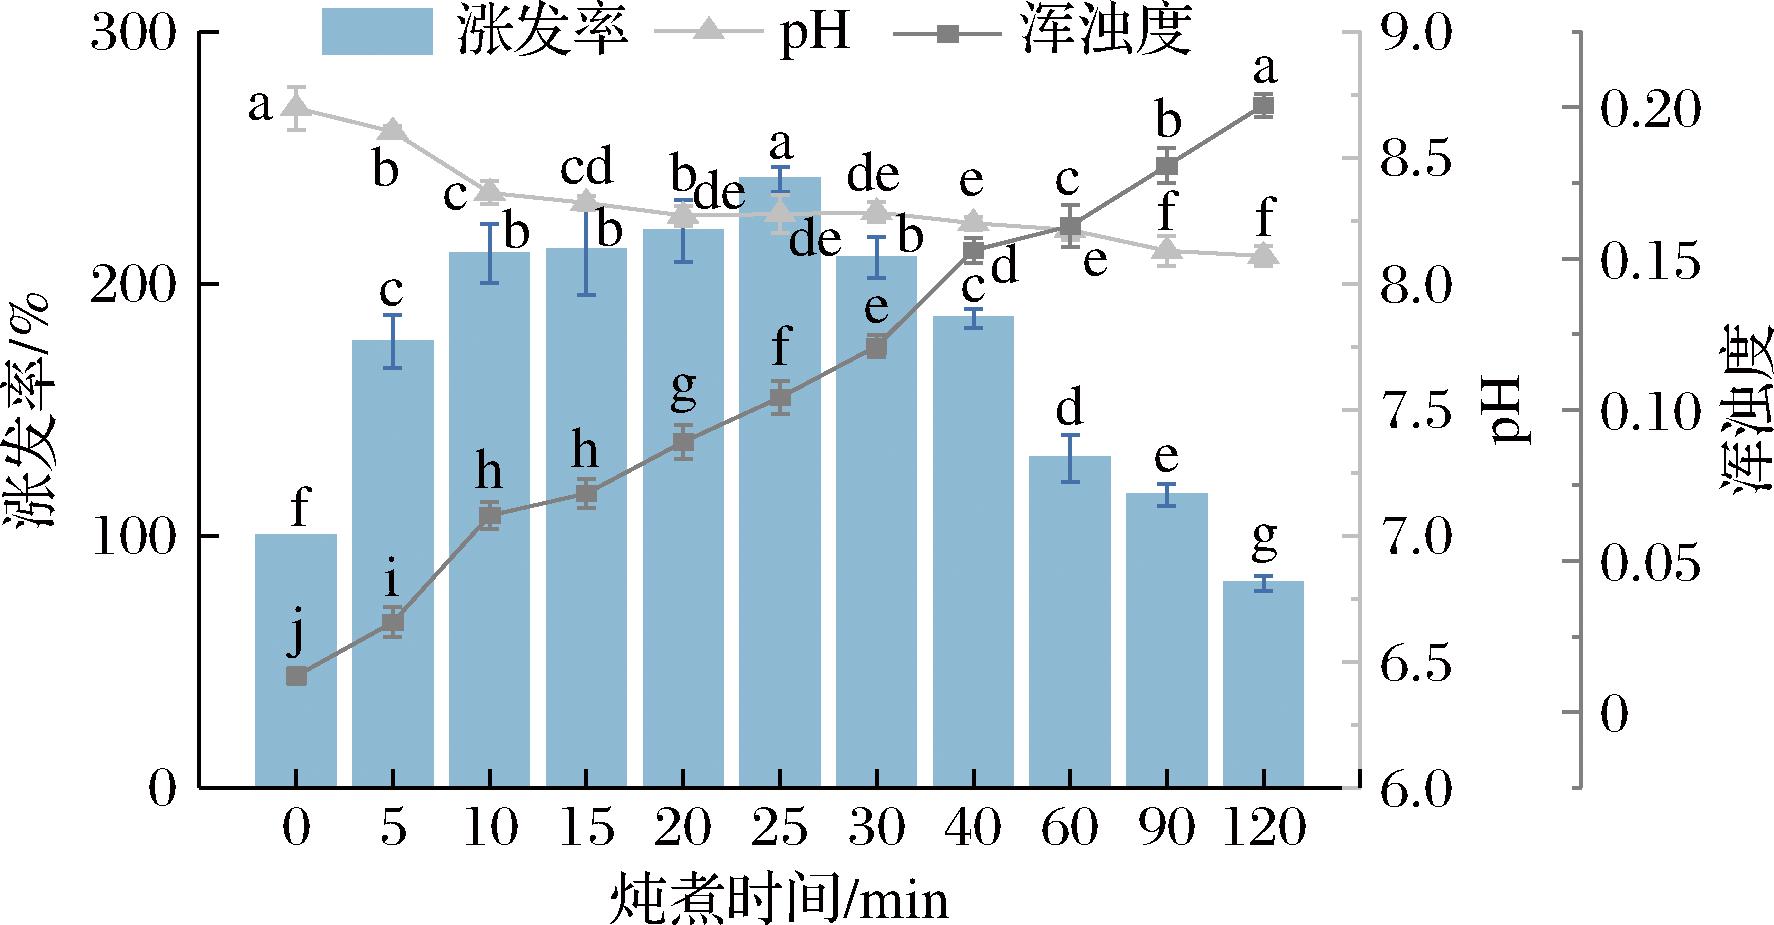
图1 炖煮过程中燕窝固体的涨发率和炖煮液的pH、浑浊度
Fig.1 Swelling ratio of EBN solids, pH, and turbidity of the cooking liquor during boiling
注:同一指标上的不同小写字母,表示不同样品在P<0.05水平存在显著性差异(下同)。
2.2 氨基酸成分分析
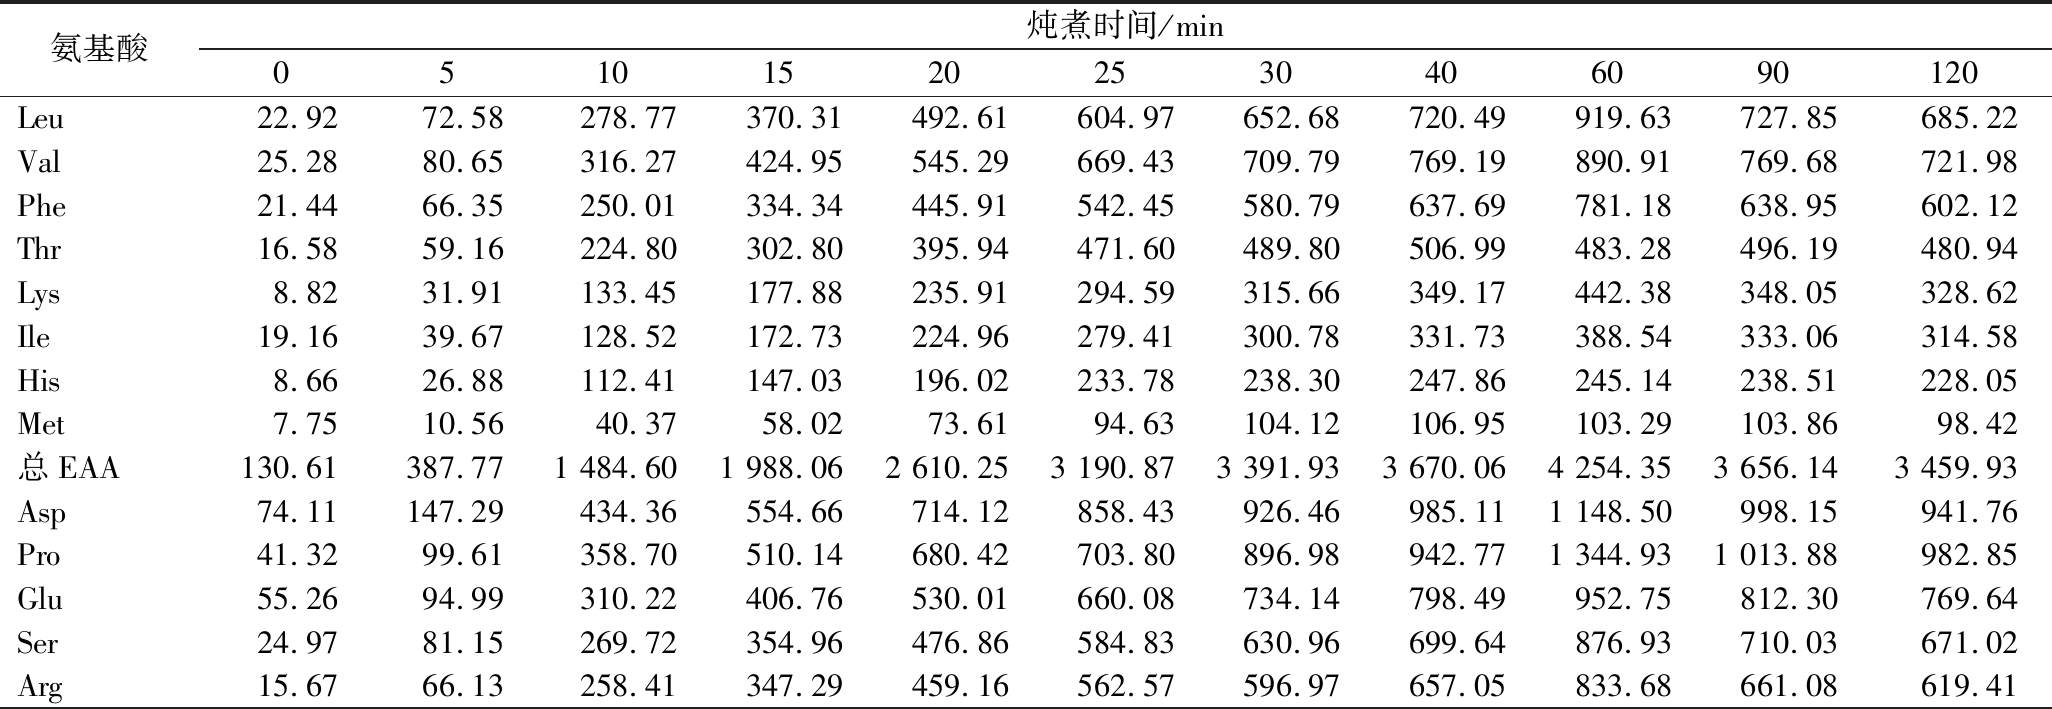
炖煮液中所含氨基酸种类相同,各个时间点的炖煮液中总NEAA总是高于EAA。其中2种必需氨基酸(亮氨酸、缬氨酸)和2种非必需氨基酸(脯氨酸、天冬氨酸)是炖煮液中含量最高的,这与原料氨基酸谱的结果相同[6]。由表1可知,热处理0~60 min的时间内,氨基酸总量随炖煮时间延长而显著增加,60 min时达到最大值(11.17 mg/mL)。研究指出,燕窝中氨基酸与鸡蛋在组成上相似[20],含硫氨基酸(半胱氨酸和蛋氨酸)溶出量的提高可能是燕窝炖煮液中蛋腥味的由来。60~120 min的氨基酸总量开始下降,Zhang等[21]在海参体壁热稳定性研究中证实,长时间加热导致氨基酸总量下降,且美拉德反应最终产物晚期糖基化终产物(advanced glycation end products,AGEs)含量显著升高。因此,过度加热可能促使燕窝中溶出的氨基酸与糖蛋白糖链中的还原糖产生美拉德反应。此外,在整个炖煮过程中,EAA与NEAA的比值也出现先增后减的趋势,25 min时比值最大,为0.70。表明该时间点炖煮液中溶出蛋白的氨基酸组成更接近世界卫生组织提出的理想氨基酸模式[20]。
表1 不同时间炖煮液中的氨基酸组成 单位:mg/L
Table 1 Evolution of amino acid composition in the cooking liquor during boiling
氨基酸炖煮时间/min051015202530406090120Leu 22.92 72.58 278.77 370.31 492.61 604.97 652.68 720.49 919.63 727.85 685.22Val25.2880.65316.27424.95545.29669.43709.79769.19890.91769.68721.98Phe21.4466.35250.01334.34445.91542.45580.79637.69781.18638.95602.12Thr16.5859.16224.80302.80395.94471.60489.80506.99483.28496.19480.94Lys8.8231.91133.45177.88235.91294.59315.66349.17442.38348.05328.62Ile19.1639.67128.52172.73224.96279.41300.78331.73388.54333.06314.58His8.6626.88112.41147.03196.02233.78238.30247.86245.14238.51228.05Met7.7510.5640.3758.0273.6194.63104.12106.95103.29103.8698.42总EAA130.61387.771 484.601 988.062 610.253 190.873 391.933 670.064 254.353 656.143 459.93Asp74.11147.29434.36554.66714.12858.43926.46985.111 148.50998.15941.76Pro41.3299.61358.70510.14680.42703.80896.98942.771 344.931 013.88982.85Glu55.2694.99310.22406.76530.01660.08734.14798.49952.75812.30769.64Ser24.9781.15269.72354.96476.86584.83630.96699.64876.93710.03671.02Arg15.6766.13258.41347.29459.16562.57596.97657.05833.68661.08619.41
续表1
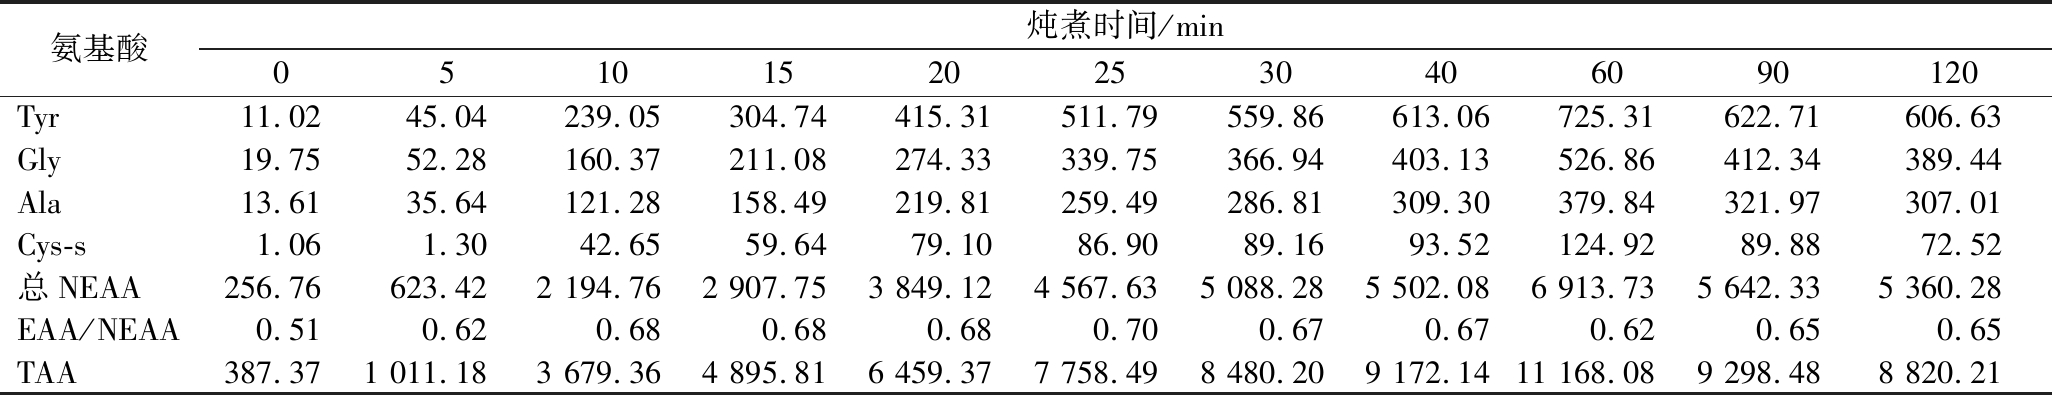
注:Asp-天冬氨酸;Glu-谷氨酸;Ser-丝氨酸;His-组氨酸;Gly-甘氨酸;Thr-苏氨酸;Arg-精氨酸;Ala-丙氨酸;Tyr-酪氨酸;Cys-s-半胱氨酸;Val-缬氨酸;Met-蛋氨酸(甲硫氨酸);Phe-苯丙氨酸;Ile-异亮氨酸;Leu-亮氨酸;Lys-赖氨酸;Pro-脯氨酸;EAA-必需氨基酸;NEAA-非必需氨基酸;TAA-总氨基酸。
氨基酸炖煮时间/min051015202530406090120Tyr11.0245.04239.05304.74415.31511.79559.86613.06725.31622.71606.63Gly19.7552.28160.37211.08274.33339.75366.94403.13526.86412.34389.44Ala13.6135.64121.28158.49219.81259.49286.81309.30379.84321.97307.01Cys-s1.061.3042.6559.6479.1086.9089.1693.52124.9289.8872.52总NEAA256.76623.422 194.762 907.753 849.124 567.635 088.285 502.086 913.735 642.335 360.28EAA/NEAA0.510.620.680.680.680.700.670.670.620.650.65TAA387.371 011.183 679.364 895.816 459.377 758.498 480.209 172.1411 168.089 298.488 820.21
2.3 溶出蛋白质浓度与结构分析
Yan等[20]的研究表明,燕窝天然不溶于水,其蛋白质的溶出行为与结构变化密切相关。如图2-b所示,炖煮液中的蛋白质浓度随炖煮时间延长呈现出快速上升趋势,在60 min时炖煮液中蛋白质量浓度最高,达11.80 mg/mL,这与此前加热破坏了海参体壁胶原蛋白结构导致蛋白溶出的研究结果一致[22]。90~120 min的蛋白质浓度开始下降,同样的趋势也出现在炖煮液氨基酸总量中(表1),印证了过度热处理导致氨基酸流失。相关研究表明,美拉德反应后期时,蛋白质的广泛交联导致蛋白质溶解度的损失[21,23]。
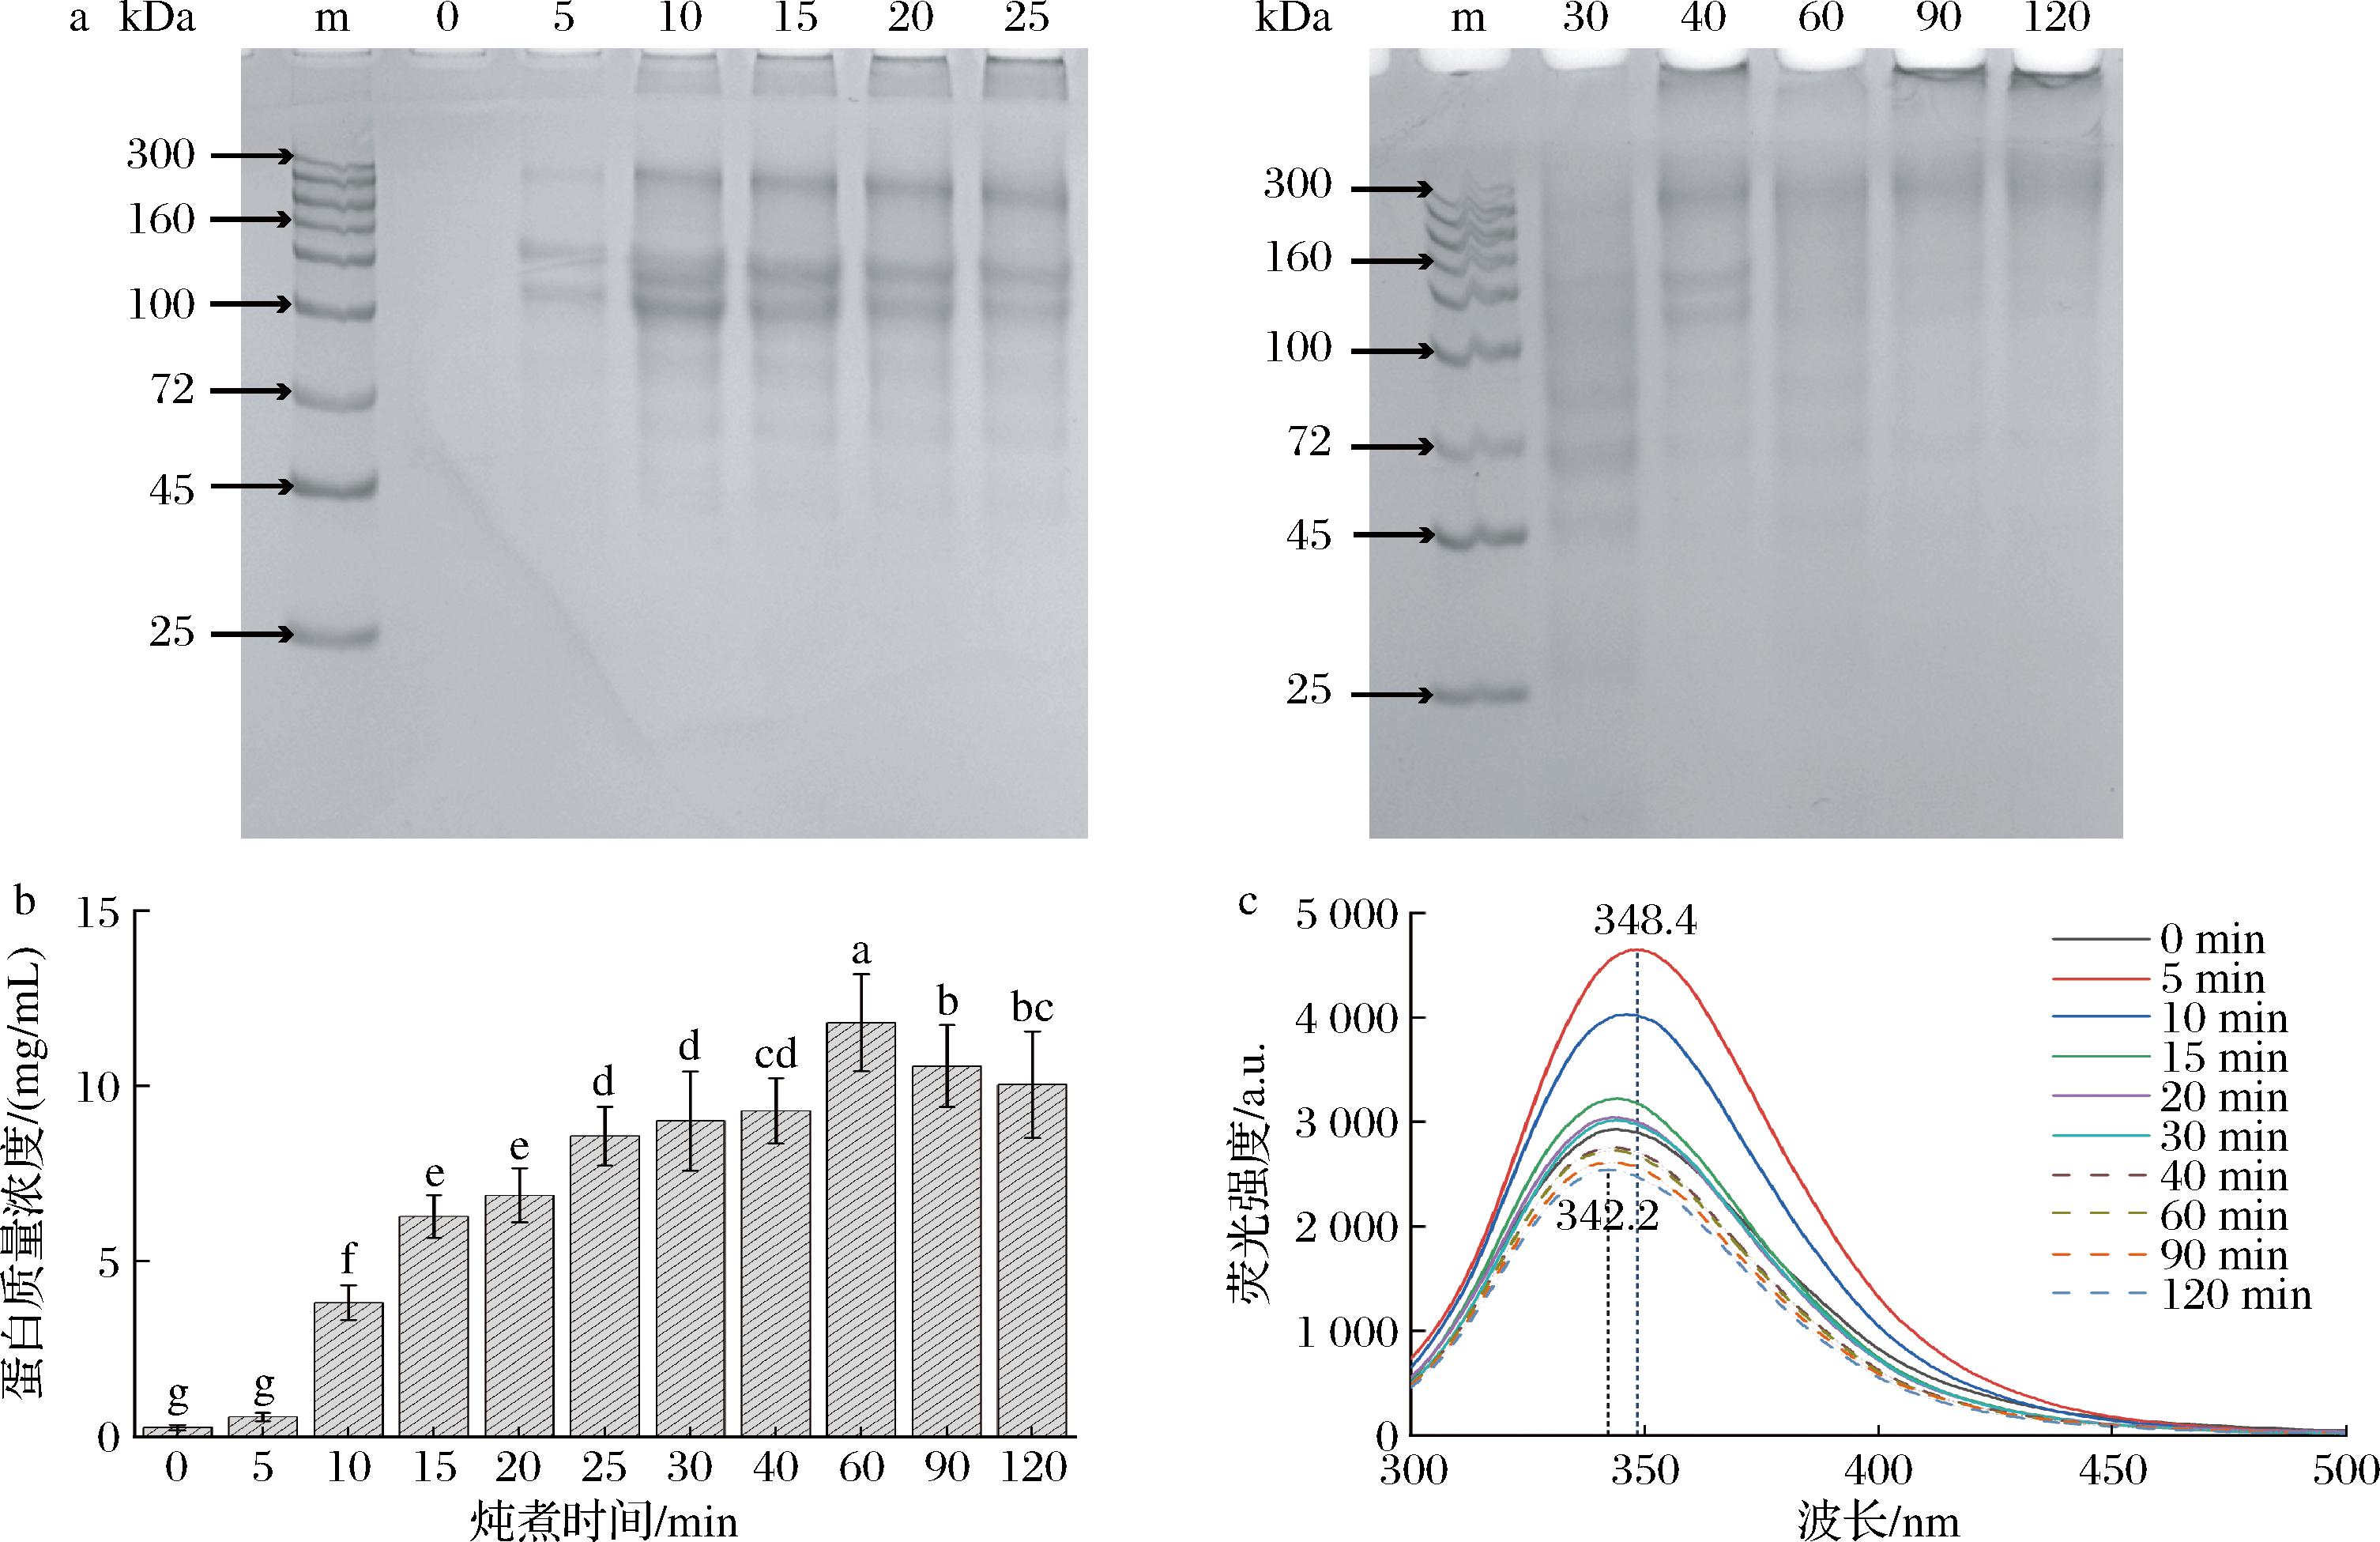
m-标准预染蛋白marker;0~120分别表示不同炖煮时间制备的样品,图7同。
a-溶出蛋白质SDS-PAGE图;b-蛋白质量浓度;c-蛋白质内源荧光光谱
图2 不同炖煮时间制备的燕窝炖煮液中蛋白质的SDS-PAGE图、质量浓度和内源荧光光谱
Fig.2 SDS-PAGE patterns, concentration, and intrinsic fluorescence spectra of proteins in the EBN cooking liquor prepared with different boiling durations
相对应地,SDS-PAGE结果(图2-a)表明,从0~10 min,蛋白条带颜色逐渐加深。10~25 min的溶出蛋白均在100~160 kDa存在2条明显蛋白带。这与Mohamad等[24]、Guo等[16]的结果完全一致,2条清晰的高丰度蛋白带分子质量分别为106 kDa与128 kDa,表征燕窝中特征的唾液酸糖蛋白的存在。唾液酸化黏蛋白糖蛋白肽链上连接着大量高度亲水的O-糖链,能够结合巨量的水分子形成水化壳[9]。因此,凝胶电泳中蛋白迁移受阻,顶部存在明显的蛋白条带堆积现象。此外,45~72 kDa处也存在2条模糊蛋白带,在Guo等[16]的研究中报道为马来西亚和印度尼西亚洞巢燕窝的天然蛋白条带,不受地理来源与生产环境的影响,这一结果也得到了Chua等[25]的研究支持。然而,炖煮时间达到30~40 min时,蛋白分子质量发生明显变化。泳道中出现明显的涂抹效应,几乎不能再观察到清晰的蛋白条带。高分子质量区域(>100 kDa)条带弥散,大分子质量蛋白发生降解;低分子质量区域(<25 kDa)条带强度增加,小分子质量蛋白发生聚集。Zhang等[22]的研究表明,海参体壁蛋白在长时间的热处理过程中,结构蛋白解聚成微原纤维与水溶性蛋白热诱导聚集同时发生。60 min后条带几乎全部堆积在凝胶顶部,表明燕窝蛋白在过度热处理下聚集成大分子团(>300 kDa)。这对应了炖煮液中蛋白质含量与氨基酸含量在60 min后均发生下降(图2-b和表1)。
此外,还利用内源荧光光谱进一步研究热处理对燕窝蛋白构象转化的影响(图2-c)。相对仅泡发的实验组(0 min),溶出蛋白内源荧光光谱在0~30 min内出现先红移再蓝移的趋势,荧光强度先增强后减弱。光谱红移表明色氨酸和酪氨酸残基微环境极性增强,这可能是由于适度热处理破坏了分子间的氢键和离子键,更有利于燕窝蛋白内部的发色团暴露,该现象与梅花鹿腿肉肌原纤维蛋白、山羊乳乳清蛋白在温和加热条件下芳香族氨基酸残基暴露的研究结论一致[11, 26]。30 min的谱图几乎重叠于0 min组,此后至120 min的实验组内,光谱持续蓝移。表明过度热处理使燕窝蛋白质分子间相互作用增强,色氨酸残基微环境疏水性增强,发生持续的构象紧缩,印证了SDS-PAGE结果中观察到的大分子聚集现象(图2-a)。
2.4 炖煮后燕窝中蛋白质二级结构变化
FTIR分析揭示了不同时间的热处理对燕窝中的蛋白质二级结构的影响,燕窝蛋白的4种二级结构含量如图3-a所示。从0~25 min,β-折叠含量从48.36%持续增加至52.48%,α-螺旋含量从17.22%减少至16%。表明前期的热处理过程将燕窝蛋白中紧密缠绕的α-螺旋解旋,促进蛋白质结构展开,暴露出疏水性和反应性残基,通过氢键与分子间疏水相互作用聚集,转变为β-折叠,该现象也出现于热处理驼乳的过程中[27]。从25~120 min,β-折叠含量先减后增,而α-螺旋含量先增后减。25 min后持续加热引发蛋白过度降解,部分β-折叠结构因肽链断裂而解体,转化为能量更低的α-螺旋和无规卷曲[22]。然而长时间炖煮(>60 min)使溶解的蛋白质重新聚集沉淀,该结果与乳清蛋白长时间热处理后产生不可逆聚集体现象一致[28]。分子间作用力随机交联形成β-折叠结构,但此时由于缺乏完整纤维骨架支撑,结构松散无序。这与此前仅有有序排列的二级结构才能形成稳定的交联网络结论相符[29]。
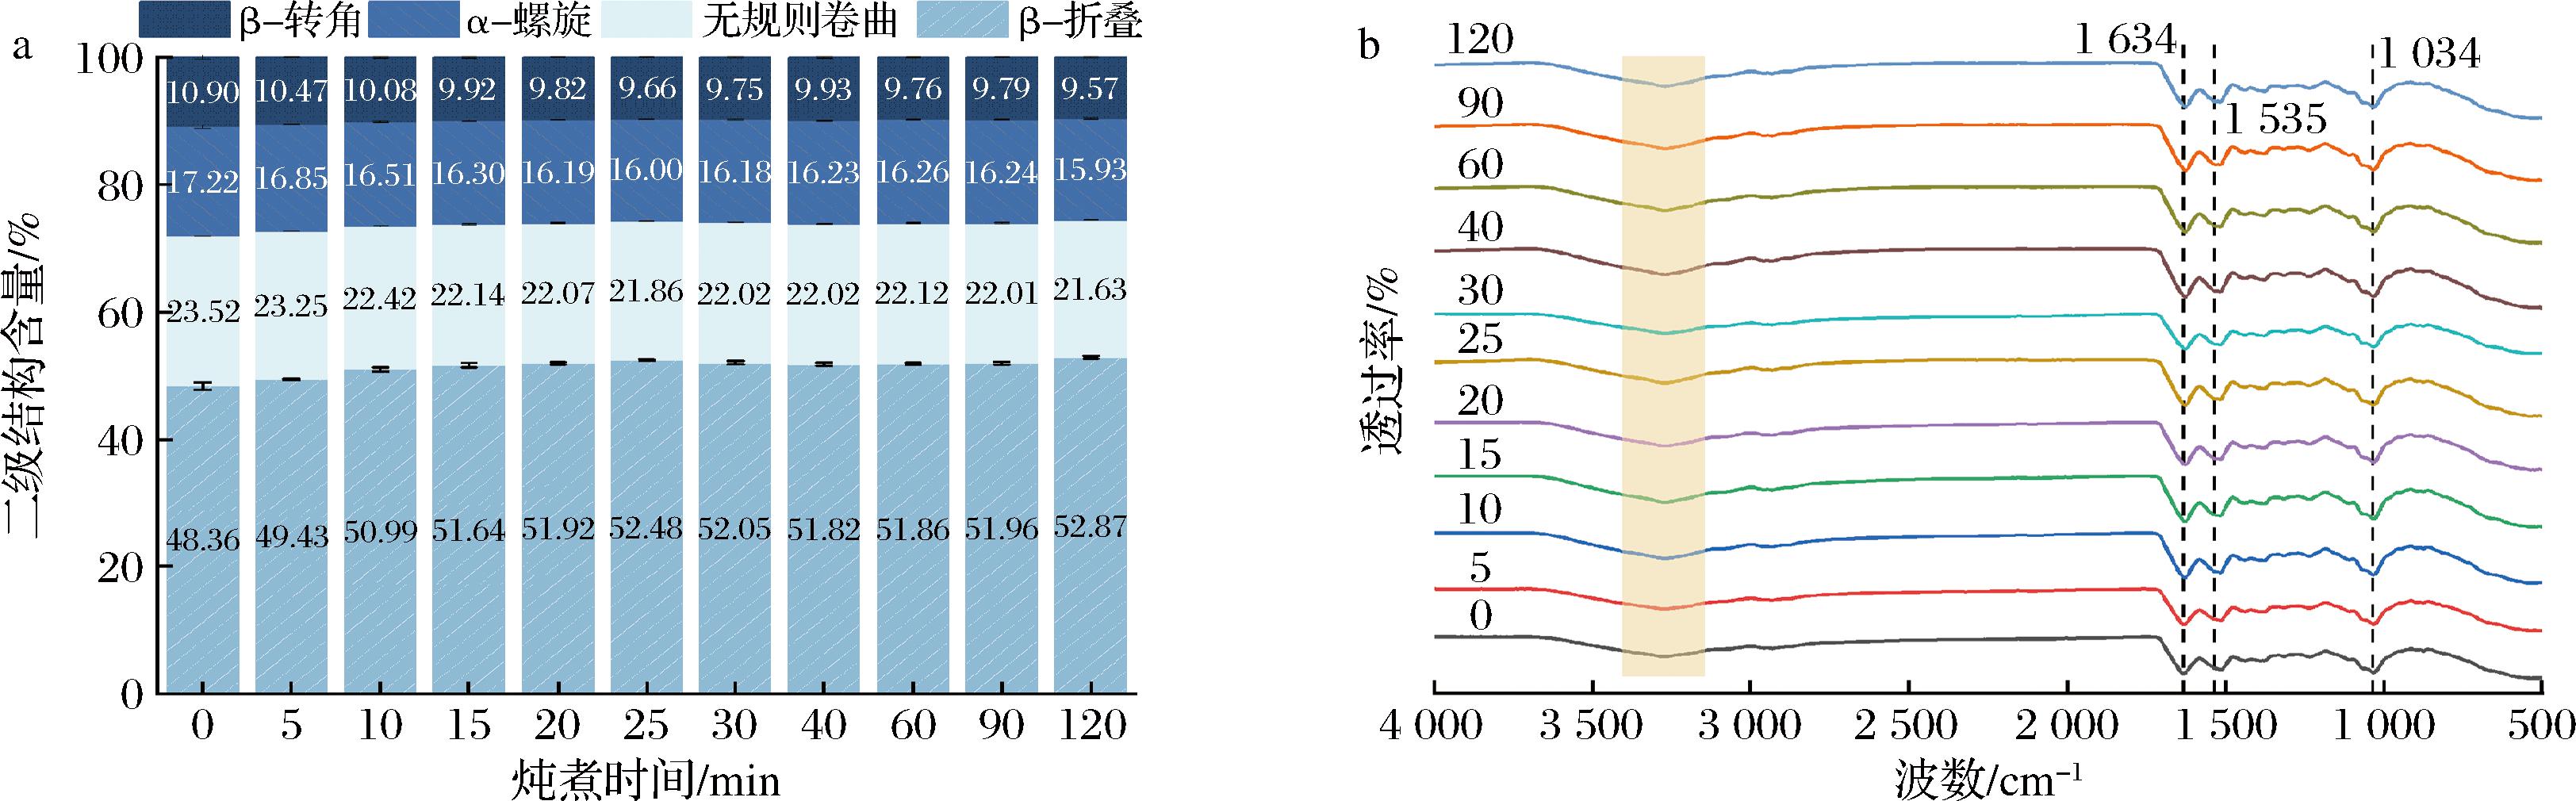
a-蛋白质二级结构含量图;b-FTIR图
图3 不同炖煮时间制备的冻干燕窝中蛋白质二级结构组成和对应的FTIR谱图
Fig.3 The protein secondary structure composition and the corresponding FTIRspectra of freeze-dried edible bird’s nest prepared at different boiling times
如图3-b所示,各组冻干燕窝样品光谱图相似。所有燕窝样品在3 262~3 274 cm-1范围内呈现出宽而强的吸收带,由体系中形成强氢键的O—H和N—H伸缩振动叠加所致[30]。亲水性基团(—NH, —OH)与燕窝糖蛋白多糖链上的O原子、自身蛋白质链上的C O(羰基)等形成分子间和分子内氢键,构成的氢键网络能够通过亲水位点结合水分子,使冻干燕窝在冲泡过程中达到快速复水的效果。在1 634 cm-1 和1 535 cm-1附近的尖锐吸收峰分别对应酰胺Ⅰ带(CO伸缩振动)和酰胺Ⅱ带(N—H弯曲/C—N伸缩振动),是蛋白质肽链骨架的特征信号。多糖类的特征强宽峰则出现在1 034 cm-1附近,是燕窝中富含糖蛋白的明确标志,与先前研究结果一致[9]。加热过程并没有改变燕窝糖蛋白的基本共价结构,主要导致构象与相互作用变化,这与Ng等[31]的研究结果相一致。
2.5 即食冲泡燕窝复水比和质地变化
如图4所示,炖煮至25 min时冻干燕窝复水比达到最高(31.37倍),随后下降。该变化趋势也体现在前期热处理炖煮燕窝中,干燕条经泡发后在25 min炖煮处理时拥有最大涨发率(图1)。真空冷冻干燥处理最大程度地保留了样品充分打开的网络结构[32],25 min组干制燕窝泡发表现最佳。经过60 min炖煮的冻干燕窝复水比已经低于仅泡发的燕窝(0 min)。在长时间热处理下,固体中燕窝蛋白结构坍塌,持水能力大大降低。部分蛋白发生溶解,对应于图2-b中,炖煮液中蛋白浓度达到最高值。Lin等[33]报道了经过度热处理的猪肉肌原纤维蛋白结构发生显著改变,吸水效率也大幅降低。因此,这种差异可能归因于炖煮后燕窝结构劣变,从而明显影响产品的水合作用。此外,硬度是评价凝胶类食品质构特性的核心指标之一,对于复水后的燕窝固体,产品硬度随着含水量的增加而显著降低(P<0.05),质地软化。然而,在25~120 min的处理组中,硬度先增加后减少。根据Qiao等[29]对明胶的研究结果,结构有序度降低会导致凝胶内部网络松散,进而削弱力学性能,这与图3-a中有序的α-螺旋含量降低相符。
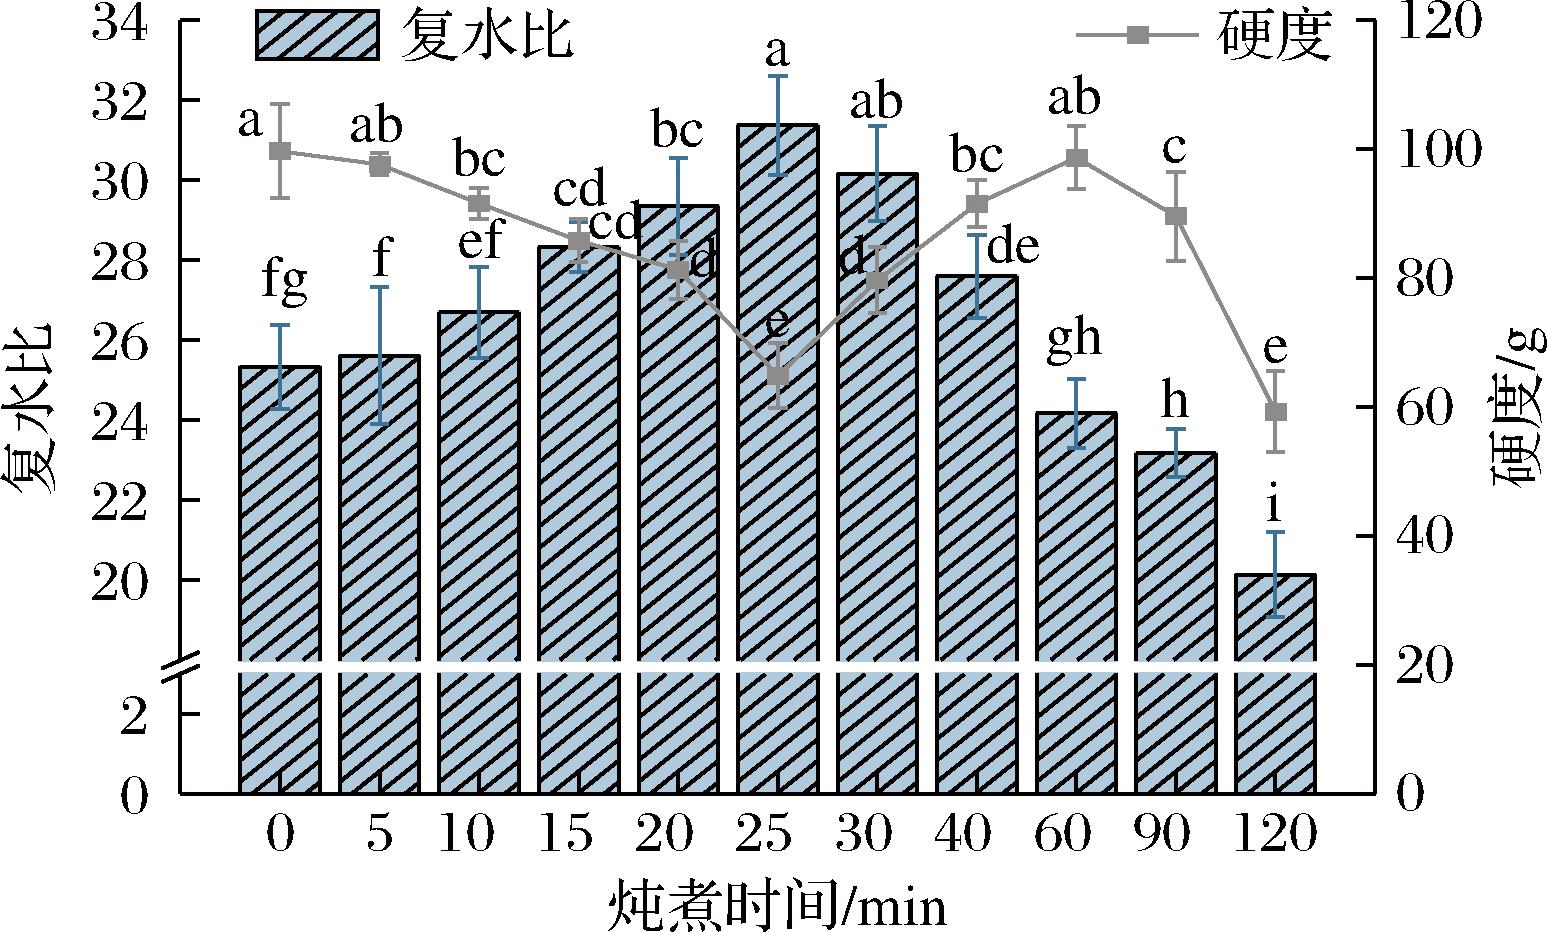
图4 不同炖煮时间下,冻干燕窝复水比和复水后燕窝硬度变化
Fig.4 Rehydration ratio and hardness of freeze-dried EBN after rehydration
注:同一指标上的不同小写字母,表示不同样品在P<0.05水平存在显著性差异。
2.6 冻干再复水燕窝SEM分析
如图5所示,对仅泡发过的燕窝(0 min)冻干后再复水,SEM结果呈现出平整的束状结构,表面光滑且几乎没有孔洞,水分难以渗透[29]。随着前处理中炖煮时间延长,再复水后的燕窝表面孔洞逐渐加深、增多,孔隙结构明显,在炖煮25 min时出现排列有序、大小均匀的密集孔洞。Yang等[30]的研究表明,密集、完整的蛋白凝胶结构具有更好的稳定性与持水性。因此,通过适当的热处理,燕窝毛细结构充分打开,再复水时能最大限度保持水分,这一结果与复水比相符合(图4)。当炖煮时间超过40 min后,可以观察到表面孔洞大小不均匀、部分坍塌的现象。根据Feng等[32]的研究,食品的再水化能力直接受到结构变化的影响。观察炖煮至120 min的燕窝,孔洞完全皱缩塌陷,整个组织呈无定形聚集结构,因此持水能力明显下降,复水性能最差,显著低于25 min处理组,这与过热损害Ⅰ型胶原蛋白结构的结果类似[34]。
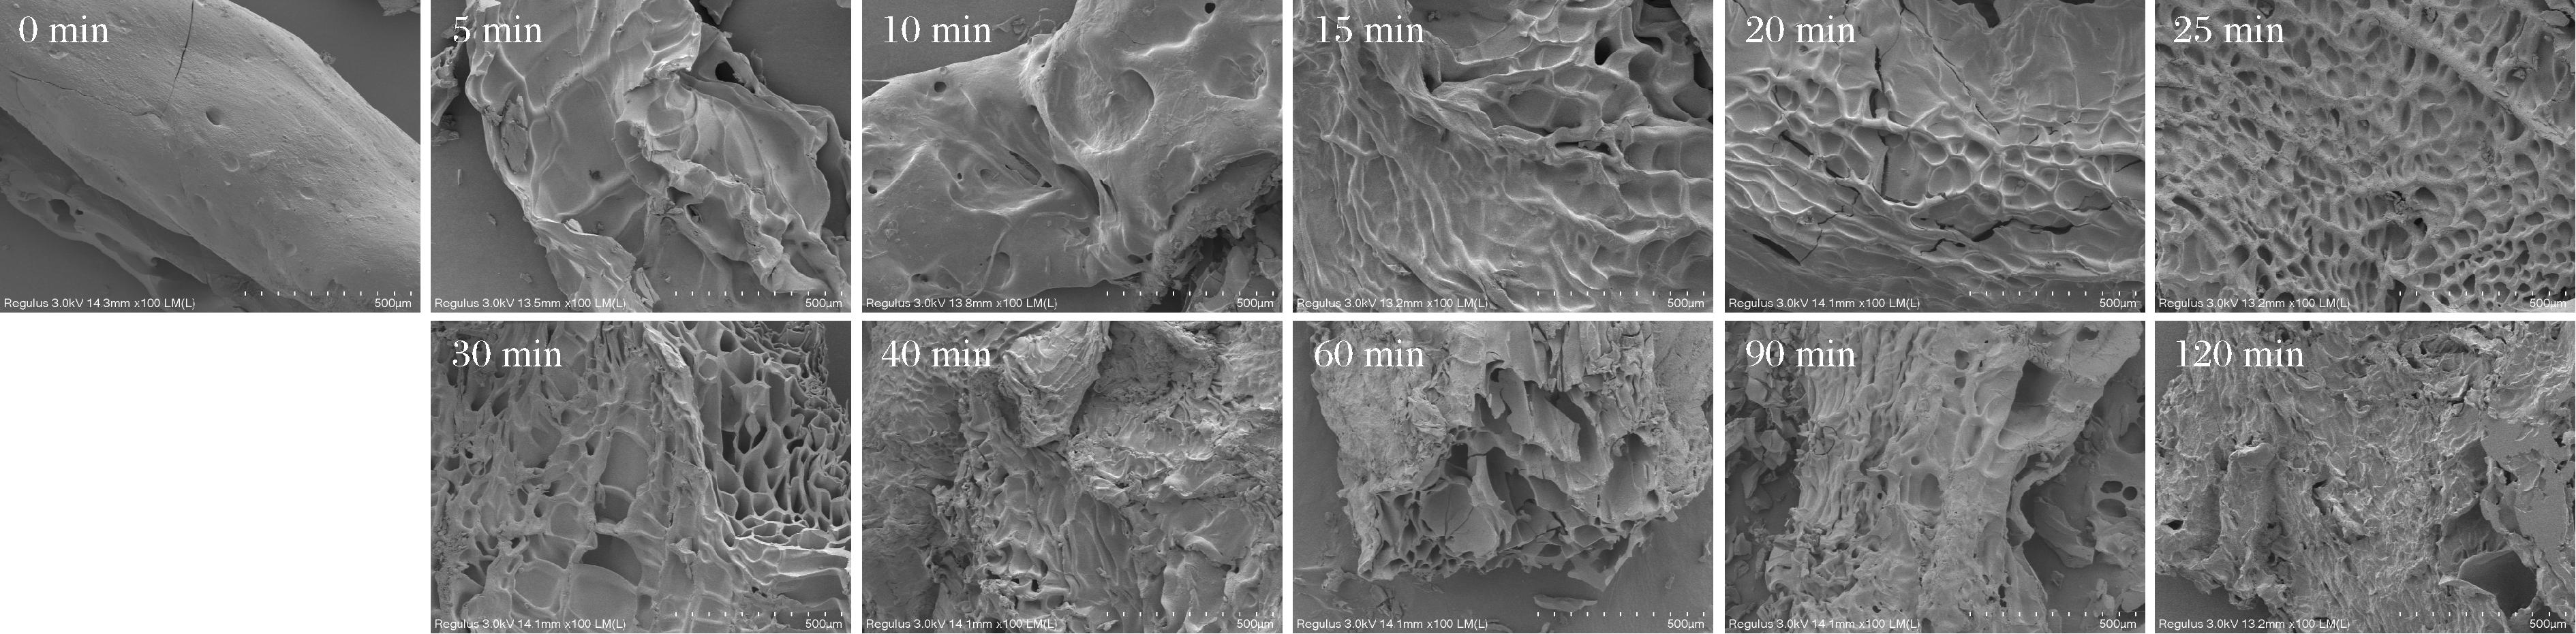
图5 不同炖煮时间下,冻干燕窝的SEM图像
Fig.5 SEM images of rehydrated EBN with different boiling times
2.7 炖煮时间对即食干制燕窝消化特性的影响
2.7.1 蛋白质释放量与固形物残留率
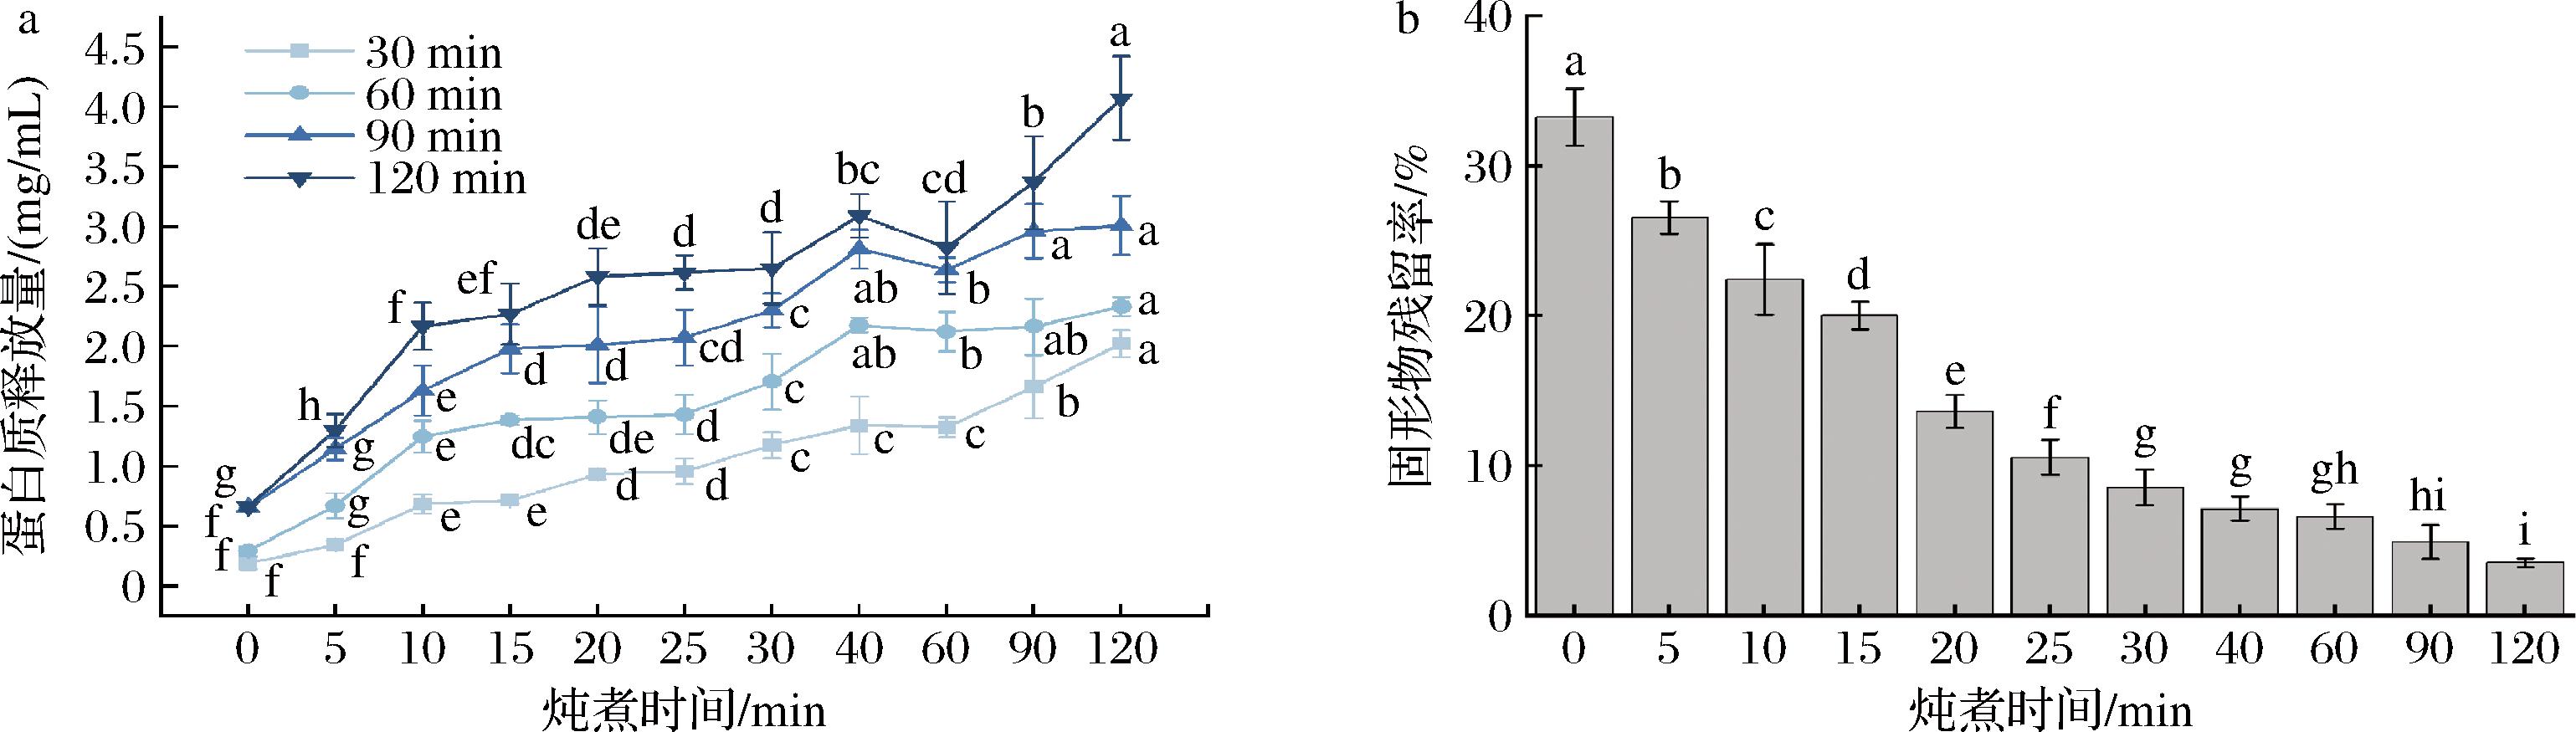
食品来源蛋白的热处理可能导致结构变化,从而影响其消化率[11],复水燕窝的模拟胃消化结果如图6所示。在2 h的胃消化过程中,仅泡发处理的燕窝(0 min)蛋白质释放量显著低于各加热处理组,消化后固形物含量最高。热处理5~15 min的复水冻干燕窝,蛋白质释放量明显提高。15~30 min处理组蛋白质的释放量逐渐趋于稳定,仅有轻微上升。热处理25 min的冻干燕窝在模拟胃消化结束后,上清液中检测到约2.62 mg/mL的燕窝蛋白。相应地,25 min内的实验组消化后得到的燕窝固形物残留率呈持续下降趋势,最终降至10.53%。适度加热可促使蛋白结构舒展和解链,暴露更多酶解位点[35],这既提升了燕窝蛋白的消化利用效率,又能够维持合理的固形物残留率[12],进而保障产品的延缓胃排空能力。40~120 min的处理组中,蛋白质释放量再次大幅度提升。120 min的处理组经消化后几乎完全降解,固形物残留率降低至3.53%。过度热处理严重破坏燕窝的凝胶特性和结构稳定性,降低了其作为功能性食品的价值,在对鸡皮胶原蛋白的研究中发现相同结果[36]。
a-蛋白质释放量;b-消化后固形物残留率
图6 冻干燕窝复水后在模拟胃消化过程中的蛋白质释放量及消化后固形物残留率
Fig.6 Protein release content and post-digestion residual solid content of rehydrated freeze-dried EBN during simulated gastric digestion
2.7.2 消化后蛋白结构变化
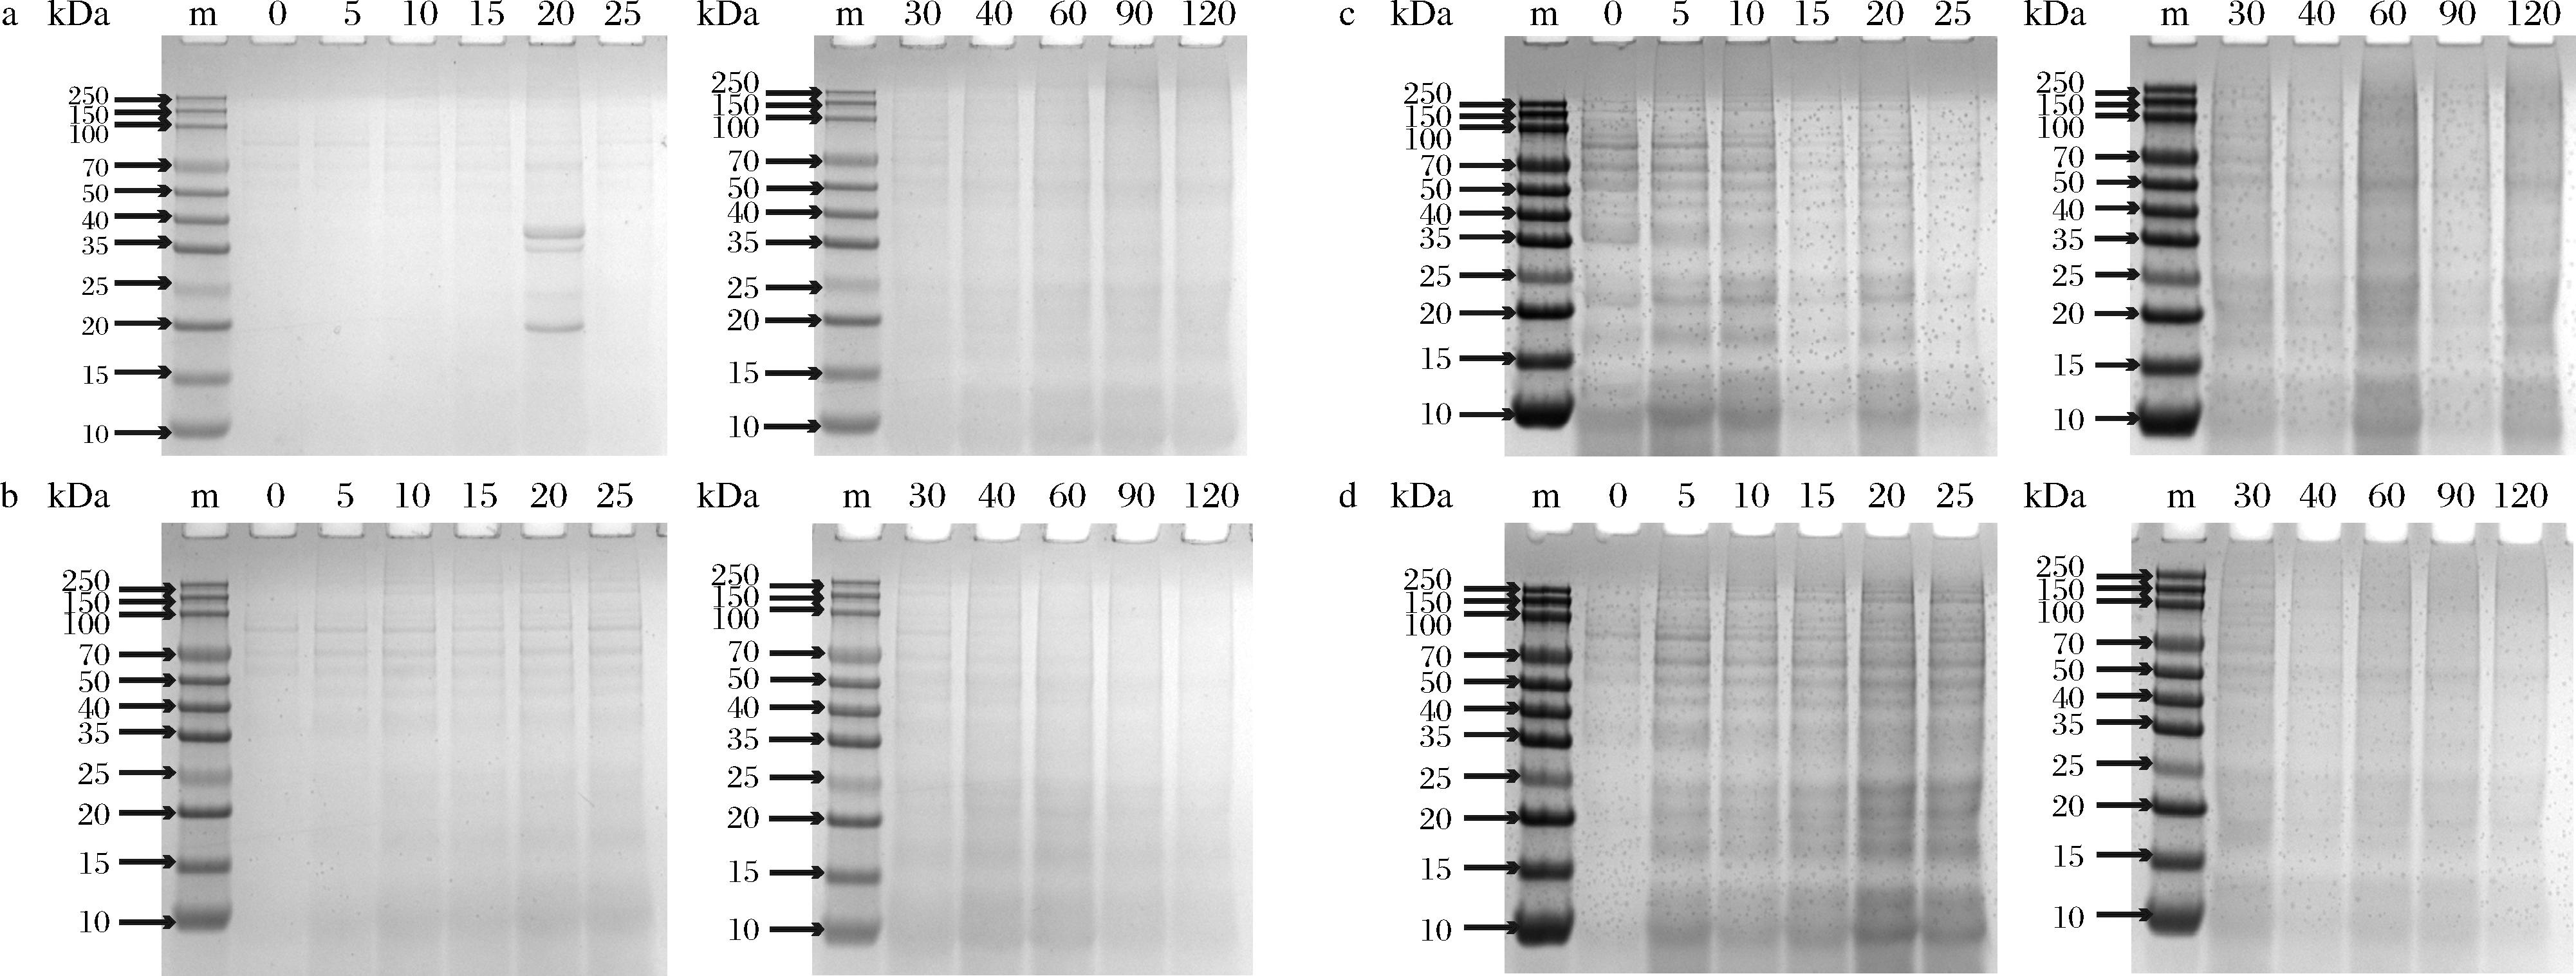
图7展示了不同模拟胃消化时间点上清液的可溶性蛋白亚基组成。在开始消化的30 min,0~25 min处理组的样品所释放的蛋白含量较少(见图7-a),泳道上几乎不可见蛋白条带,说明短时间热处理下燕窝仍然维持紧密的蛋白结构,胃蛋白酶难以结合消化位点。而30 min以后的处理组,在15~25 kDa处可见特征条带,但拖尾现象明显,泳道上方可见大分子质量蛋白条带。因此炖煮时间过长可能促进蛋白质早期溶出,但大分子组分降解不充分。消化60 min后,0~25 min组已经可见清晰的唾液酸化黏蛋白糖蛋白特征条带。消化90~120 min,0~25 min组均有清晰可见的不同分子质量特征条带,几乎没有拖尾,燕窝蛋白在胃消化后期充分降解,可溶性蛋白亚基组成稳定且均一。而30~120 min的处理组直至消化结束,泳道上仍以大分子蛋白为主,仅在消化120 min的取样点观察到100~160 kDa的特征条带,这与前文长时间预炖煮可能导致燕窝蛋白发生过度热变性与分子聚集的结果相符合。Li等[37]的研究证实,干热处理可通过美拉德反应使鲍鱼肌原纤维蛋白与多糖形成共价偶联物,伴随蛋白α-螺旋解旋、β-折叠含量升高的二级结构重构,随干热时间延长,消化产物中小于1 000 Da的小分子组分减少,1 000~5 000 Da美拉德肽增多。因此,长时间热处理形成难以被胃蛋白酶高效降解的大分子复合物,显著影响燕窝蛋白的消化吸收过程,适度热加工介导的蛋白结构变化有效改善燕窝蛋白的消化特性。
a-30 min;b-60 min;c-90 min;d-120 min
图7 体外模拟胃消化过程中释放的燕窝蛋白的SDS-PAGE图
Fig.7 The SDS-PAGE patterns of EBN protein released during simulated gastric digestion
3 结论与讨论
热处理诱导的燕窝凝胶-溶胶相变过程对即食干制燕窝品质和消化特性均有显著影响。在炖煮0~25 min阶段,蛋白质发生适度去折叠,α-螺旋向β-折叠的构象转化促进了亲水结合位点暴露,分子间形成有序交联网络。25 min时燕窝涨发率达到最大值,此时炖煮液中溶出的氨基酸组成最接近理想模式,SEM结果显示燕窝内部形成有序多孔结构,所制备即食燕窝复水比达到峰值、质地最软。炖煮时间继续延长,30 min处理组凝胶网络结构开始劣变,出现“化水”现象。内源荧光光谱与SDS-PAGE结果显示在炖煮40~120 min,溶出蛋白在分子间作用力下发生热聚集变性,过热处理下即食燕窝结构坍塌,在消化过程中难以有效降解为小分子质量蛋白。
综上所述,炖煮25 min为燕窝构建稳定凝胶网络结构的极值点,有利于表面均匀孔隙的形成,从而保障即食产品优异的复水品质与消化特性。本研究结果为优化燕窝加工工艺提供了重要依据,对考察高蛋白凝胶类食品热加工下蛋白结构的变化也具有重要参考价值。但实验仍存在一定局限性,静态模拟消化模型难以完全还原人体真实消化环境,且未考虑燕窝中多糖等组分在热处理过程中的降解及其与蛋白质的相互作用,未来研究可结合体内消化模型及多组分协同作用进一步深入分析。
[1] 李翠, 徐小涵, 林小仙, 等. 燕窝营养成分与功效研究现状[J]. 食品与发酵工业, 2023: 1-9.Li C, Xu X H, Lin X X, et al. Research status of nutritional ingredients and functions of edible bird’s nest[J]. Food and Fermentation Industries, 2023: 1-9.
[2] 朱娇, 吴剑荣, 牛文璇, 等. 食源唾液酸糖肽糖基化修饰对病原微生物和老人肠道菌群的影响[J]. 食品与发酵工业, 2025, 51(22): 89-100.Zhu J, Wu J R, Niu W X, et al. Impact of dietary sialoglycopeptides glycosylation on pathogenic microorganisms and gut microbiota in elderly individuals[J]. Food and Fermentation Industries, 2025, 51(22): 89-100.
[3] Qiu Y, Bi J F, Jin X, et al. Investigation on the rehydration mechanism of freeze-dried and hot-air dried shiitake mushrooms from pores and cell wall fibrous material[J]. Food Chemistry, 2022, 383:132360.
[4] 郭政铭, 王博, 王玉川, 等. 中试脉冲喷动床微波冻干山楂干燥特性与品质特性研究[J]. 食品与发酵工业, 2024, 50(7): 227-235.Guo Z M, Wang B, Wang Y C, et al. Drying and quality characteristics of hawthorn after pilot-scale pulse-spouted bed microwave freeze-drying[J]. Food and Fermentation Industries, 2024, 50(7): 227-235.
[5] 赵建生, 马相杰, 孟少华, 等. 热变性程度对谷氨酰胺转氨酶诱导大豆分离蛋白凝胶性质的影响[J]. 食品与发酵工业, 2023, 49(2): 99-105.Zhao J S, Ma X J, Meng S H, et al. Effect of heating denaturation degree on gel properties of soy protein induced by transglutaminase[J]. Food and Fermentation Industries, 2023, 49(2): 99-105.
[6] Shi F C, Liu F, Jin Y M, et al. High-intensity pulse magnetic field treatment of cubilose gel and its response signal analysis[J]. Food Hydrocolloids, 2026, 172:112174.
[7] 吕梓瑞, 赵小依, 钱楠, 等. 燕角酶解产物工艺优化及对皮肤保护潜力的评价[J]. 食品与发酵工业, 2025, 51(13): 243-252.Lyu Z R, Zhao X Y, Qian N, et al. Optimization of enzymatic hydrolysis product of edible bird’s nest horns and evaluation of its potential for skin protection[J]. Food and Fermentation Industries, 2025, 51(13): 243-252.
[8] Lau A H, Tsui V T, Hung K I, et al. Top-down proteomics analysis revealed proteoform biomarkers for authenticating edible bird’s nest[J]. Food Chemistry, 2026, 505:148020.
[9] Gan J Y, Chang L S, Mat Nasir N A, et al. Evaluation of physicochemical properties, amino acid profile and bioactivities of edible Bird’s nest hydrolysate as affected by drying methods[J]. LWT, 2020, 131:109777.
[10] Zad Bagher Seighalani F, McMahon D J, Sharma P. Determination of critical gel-sol transition point of highly concentrated micellar casein concentrate using multiple waveform rheological technique[J]. Food Hydrocolloids, 2021, 120:106886.
[11] 薛海燕, 谈雅琳, 贺宝元, 等. 山羊乳乳清蛋白热聚集对其乳铁蛋白活性影响[J]. 食品与发酵工业, 2025: 1-14.Xue H Y, Tan Y L, He B Y, et al. Effect of thermal aggregation of goat milk whey proteins on lactoferrin activity[J]. Food and Fermentation Industries, 2025: 1-14.
[12] Wang D H, Zheng X Y, Fan Q Y, et al. The effect of dynamic high-pressure microfluidization on the physicochemical and digestive properties of proteins in insoluble fraction of edible bird’s nest[J]. Food Frontiers, 2022, 3(2):339-346.
[13] Kong H K, Wong K H, Lo S C. Identification of peptides released from hot water insoluble fraction of edible bird’s nest under simulated gastro-intestinal conditions[J]. Food Research International, 2016, 85:19-25.
[14] 钱楠, 张琳婧, 李秋实, 等. 原料蒸制预处理对即食燕窝品质的影响研究[J]. 食品与发酵工业, 2023, 49(20): 81-90.Qian N, Zhang L J, Li Q S, et al. Study on effect of steaming pre-treatment on quality of ready-to-eat edible bird’s nest[J]. Food and Fermentation Industries, 2023, 49(20): 81-90.
[15] Du X, Zhao M N, Pan N, et al. Tracking aggregation behaviour and gel properties induced by structural alterations in myofibrillar protein in mirror carp (Cyprinus carpio) under the synergistic effects of pH and heating[J]. Food Chemistry, 2021, 362:130222.
[16] Guo L L, Wu Y J, Liu M C, et al. Determination of edible bird’s nests by FTIR and SDS-PAGE coupled with multivariate analysis[J]. Food Control, 2017, 80:259-266.
[17] 赵小依, 方佳豪, 郭怡君, 等. 燕窝神经保护作用研究进展[J]. 食品与发酵工业, 2024, 50(20): 367-374.Zhao X Y, Fang J H, Guo Y J, et al. Research progress on neuroprotective effects of edible bird’s nests[J]. Food and Fermentation Industries, 2024, 50(20): 367-374.
[18] Kong W J, Zhang T, Feng D D, et al. Effects of modified starches on the gel properties of Alaska Pollock surimi subjected to different temperature treatments[J]. Food Hydrocolloids, 2016, 56:20-28.
[19] Joung B C, Min J G. Changes in postfermentation quality during the distribution process of anchovy (Engraulis japonicus) fish sauce[J]. Journal of Food Protection, 2018, 81(6):969-976.
[20] Yan T H, Babji A S, Lim S J, et al. A systematic review of edible swiftlet’s nest (ESN): Nutritional bioactive compounds, health benefits as functional food, and recent development as bioactive ESN glycopeptide hydrolysate[J]. Trends in Food Science &Technology, 2021, 115:117-132.
[21] Zhang M, Liu Y X, Jin M L, et al. The effect of heat treatment on the digestion and absorption properties of protein in sea cucumber body wall[J]. Foods, 2023, 12(15):2896.
[22] Zhang M, Liu Y X, Wu Z X, et al. Analysis of texture properties and water-soluble fraction proteome of sea cucumber body wall with different boiling heating treatment[J]. Food Chemistry, 2023, 409:135333.
[23] Nooshkam M, Varidi M, Verma D K. Functional and biological properties of Maillard conjugates and their potential application in medical and food: A review[J]. Food Research International, 2020, 131:109003.
[24] Mohamad Nasir N N, Mohamad Ibrahim R, Abu Bakar M Z, et al. Characterization and extraction influence protein profiling of edible bird’s nest[J]. Foods, 2021, 10(10):2248.
[25] Chua Y G, Chan S H, Bloodworth B C, et al. Identification of edible Bird’s nest with amino acid and monosaccharide analysis[J]. Journal of Agricultural and Food Chemistry, 2015, 63(1):279-289.
[26] 李越佳, 王琛, 李潇, 等. 不同加热条件对梅花鹿腿肉品质及其肌原纤维蛋白特性的影响[J]. 食品与发酵工业, 2025: 1-12.Li Y J, Wang C, Li X, et al. Effects of different heating conditions on meat quality and myofibrillar protein properties of sika deer leg meat[J]. Food and Fermentation Industries, 2025: 1-12.
[27] 代兴艳, 海勒, 何静. 热处理对驼乳组成及加工特性的影响研究进展[J]. 食品与发酵工业, 2026: 1-9.Dai X Y, Hai L, He J. Research progress on the mechanism of heat treatment effects on camel milk composition and processing characteristics[J]. Food and Fermentation Industries, 2026: 1-9.
[28] Zhang L N, Zhou R Y, Zhang J Y, et al. Heat-induced denaturation and bioactivity changes of whey proteins[J]. International Dairy Journal, 2021, 123:105175.
[29] Qiao C D, Wang X J, Zhang J L, et al. Influence of salts in the Hofmeister series on the physical gelation behavior of gelatin in aqueous solutions[J]. Food Hydrocolloids, 2021, 110:106150.
[30] Yang S J, Hao W H, Yu J Q, et al. Pectin oligosaccharides stabilize sea cucumbers against heat-induced deterioration[J]. Food Hydrocolloids, 2026, 172:112025.
[31] Ng C H, Tang P L, Ong Y Y. Combined effects of pretreatment and type of protease on the chemical and bioactive properties of edible bird’s nest glycopeptides[J]. Journal of Food Measurement and Characterization, 2025, 19(9):6568-6583.
[32] Feng Y B, Xu B G, ElGasim A Yagoub A, et al. Role of drying techniques on physical, rehydration, flavor, bioactive compounds and antioxidant characteristics of garlic[J]. Food Chemistry, 2021, 343:128404.
[33] Lin S W, Liu Y T, Li C, et al. Underlying the regulatory mechanism of κ-carrageenan on improving the water holding capacity of myofibrillar protein gels at different NaCl levels: Emphasis on aggregation behaviour and molecular docking during heating process[J]. Food Hydrocolloids, 2026, 174:112339.
[34] Zhang M, Zhao D, Zhu S R, et al. Overheating induced structural changes of type I collagen and impaired the protein digestibility[J]. Food Research International, 2020, 134:109225.
[35] 蒲志平, 张丽娜, 张凯, 等. 热处理方式对不同物种乳蛋白消化特性的影响[J]. 食品与发酵工业, 2025, 51(6): 33-41.Pu Z P, Zhang L N, Zhang K, et al. Effect of heat treatment on digestive properties of milk proteins with different species[J]. Food and Fermentation Industries, 2025, 51(6): 33-41.
[36] Xu N, Han M Y, Shao X F, et al. Colloidal structural characteristics and variation patterns of chicken skin gelatin during thermal processing[J]. Food Chemistry, 2025, 493:145920.
[37] Li J M, Shi L F, Ren Z Y, et al. Effects of dry-heat treatment on the physicochemical properties of abalone muscle glycoprotein and the antioxidant activity of its digestive products[J]. Food Chemistry, 2026, 511:148685.