大黄鱼(Larimichthys crocea)是我国重要的海水经济鱼类,以肉质鲜嫩和营养价值高而广受青睐,在海水养殖产业中占据关键地位[1]。然而,受过度捕捞、海洋环境污染及生态系统退化等影响,野生大黄鱼资源量显著下降,难以满足市场需求,福建宁德、浙江舟山等区域逐渐形成规模化养殖体系[2]。然而,人工养殖模式在饲料组成、水体环境及密度管理等方面与天然生境存在差异,导致野生与养殖大黄鱼在营养成分、质构特性及风味表现上存在差异:通常野生个体具有较高的蛋白质及游离氨基酸含量、更优肌肉弹性及更多鲜味前体物质[3]。目前,已有研究对不同模式下大黄鱼的营养与品质差异进行比较[3-5],但其品质差异形成的代谢调控机制尚缺乏系统解析,在一定程度上限制了高品质养殖策略的构建。
代谢组学作为系统生物学的核心分支,能够定量表征生物体内小分子代谢物的变化,揭示代谢物、环境与生理状态之间的内在联系[6]。该技术已广泛应用于水产品品质评价、品种改良及养殖环境调控等[7],如用于解析鱼片在冷藏过程中关键挥发性物质变化[8],以及水生生态共生系统对鱼类代谢与生理功能的调控效应[9]。然而,针对大黄鱼背部与腹部肌肉在不同生境条件下的代谢差异,系统研究仍相对有限。
本研究以野生与养殖大黄鱼的背、腹部肌肉为对象,采用LC-MS联用的非靶向代谢组学技术,明确差异代谢物并解析关键代谢通路,旨在阐明背腹部肌肉品质差异的分子基础及其与环境适应的代谢调控模式。研究结果可为大黄鱼品质科学评价、精准饲料设计及养殖模式改进提供理论依据。
1 材料与方法
1.1 材料与试剂
野生大黄鱼[体长(35.16±4.62) cm,体重(510.68±33.74) g]采于湛江市硇洲海域;养殖大黄鱼[体长(32.9±1.11) cm,体重(454.19±20.03) g]购于三都港官方旗舰店,养殖于福建宁德市三都港海域。将2类大黄鱼进行去内脏、头、尾和皮处理,清洗干净后按来源和取样部位分成4组,分别为野生大黄鱼背部(YE-B)和腹部(YE-F)、养殖大黄鱼背部(YZ-B)和腹部(YZ-F)。
乙腈、甲醇(色谱纯,纯度≥99.9%),美国赛默飞世尔科技公司;甲酸(色谱纯,>98%),日本TCI公司;甲酸铵(纯度≥99.9%),美国西格玛奥德里奇公司;2-氯-L-苯丙氨酸(内标标准物质,纯度98%),上海阿拉丁生化科技股份有限公司。
1.2 仪器与设备
Vanquish液相色谱仪、Q Exactive质谱仪,美国赛默飞世尔科技公司;冷冻离心机,湘仪(天津)仪器销售有限公司;BE-2600混匀仪,其林贝尔仪器制造有限公司;5305真空浓缩仪,德国艾本德股份公司。
1.3 实验方法
1.3.1 代谢物的提取
参考Dunn等[10]的方法,将背腹部肌肉在4 ℃下解冻,涡旋1 min后称取适量样本放入2 mL离心管中。向样品中加入500 μL甲醇溶液,涡旋1 min后12 000 r/min、4 ℃离心10 min。收集上清液至新的2 mL离心管中,进行浓缩干燥。随后加入150 μL由质量分数为80%甲醇水配制的2-氯-L-苯丙氨酸(4 μg/mL)进行复溶,经0.22 μm膜过滤,转移至检测瓶,用于LC-MS检测。
1.3.2 上机检测条件
色谱条件:参照Zelena等[11]的方法,使用Thermo Vanquish超高效液相系统以及(2.1 mm×100 mm, 1.8 μm)色谱柱完成分离操作。进样体积 2 μL,流速0.3 mL/min,柱温40 ℃。正离子模式,流动相为 0.1%甲酸乙腈(B2)和 0.1%甲酸水(A2),梯度洗脱程序:0~1 min,8% B2;1~8 min,8%~98% B2;8~10 min,98% B2;10~10.1 min,98%~8%B2;10.1~12 min,8% B2。负离子模式,流动相为乙腈(B3)和5 mmol/L甲酸铵水(A3),梯度洗脱程序:0~1 min,8% B3;1~8 min,8%~98% B3;8~10 min,98% B3;10~10.1 min,98%~8% B3;10.1~12 min,8% B3(均为体积分数)。
质谱条件:参照Want等[12]的方法,使用Thermo Q Exactive 质谱检测器,电喷雾离子源(ESI),正负离子模式分别采集数据。正离子喷雾电压 3.50 kV,负离子喷雾电压-2.50 kV,鞘气 40 Arb,辅助气 10 Arb。毛细管温度 325 ℃,以分辨率 70 000 进行一级全扫描,一级离子扫描范围m/z 100~1 000,并采用 HCD 进行二级裂解,碰撞能量 30 eV,二级分辨率 17 500,采集信号前 10 离子进行碎裂。
1.4 数据处理
用 Proteowizard 软件将原始质谱文件转为.mzXML 格式,经R语言 XCMS包进行软件峰检测、对齐和面积计算,结合公共数据库与自建标准品库进行物质鉴定。通过Ropls软件进行多元统计分析,置换检验验证模型,通过计算P值、VIP 值及 fold change 筛选标志代谢物,利用KEGG Mapper对显著差异代谢通路进行可视化分析。
2 结果与分析
2.1 野生与养殖大黄鱼背部和腹部差异代谢物鉴定和筛选
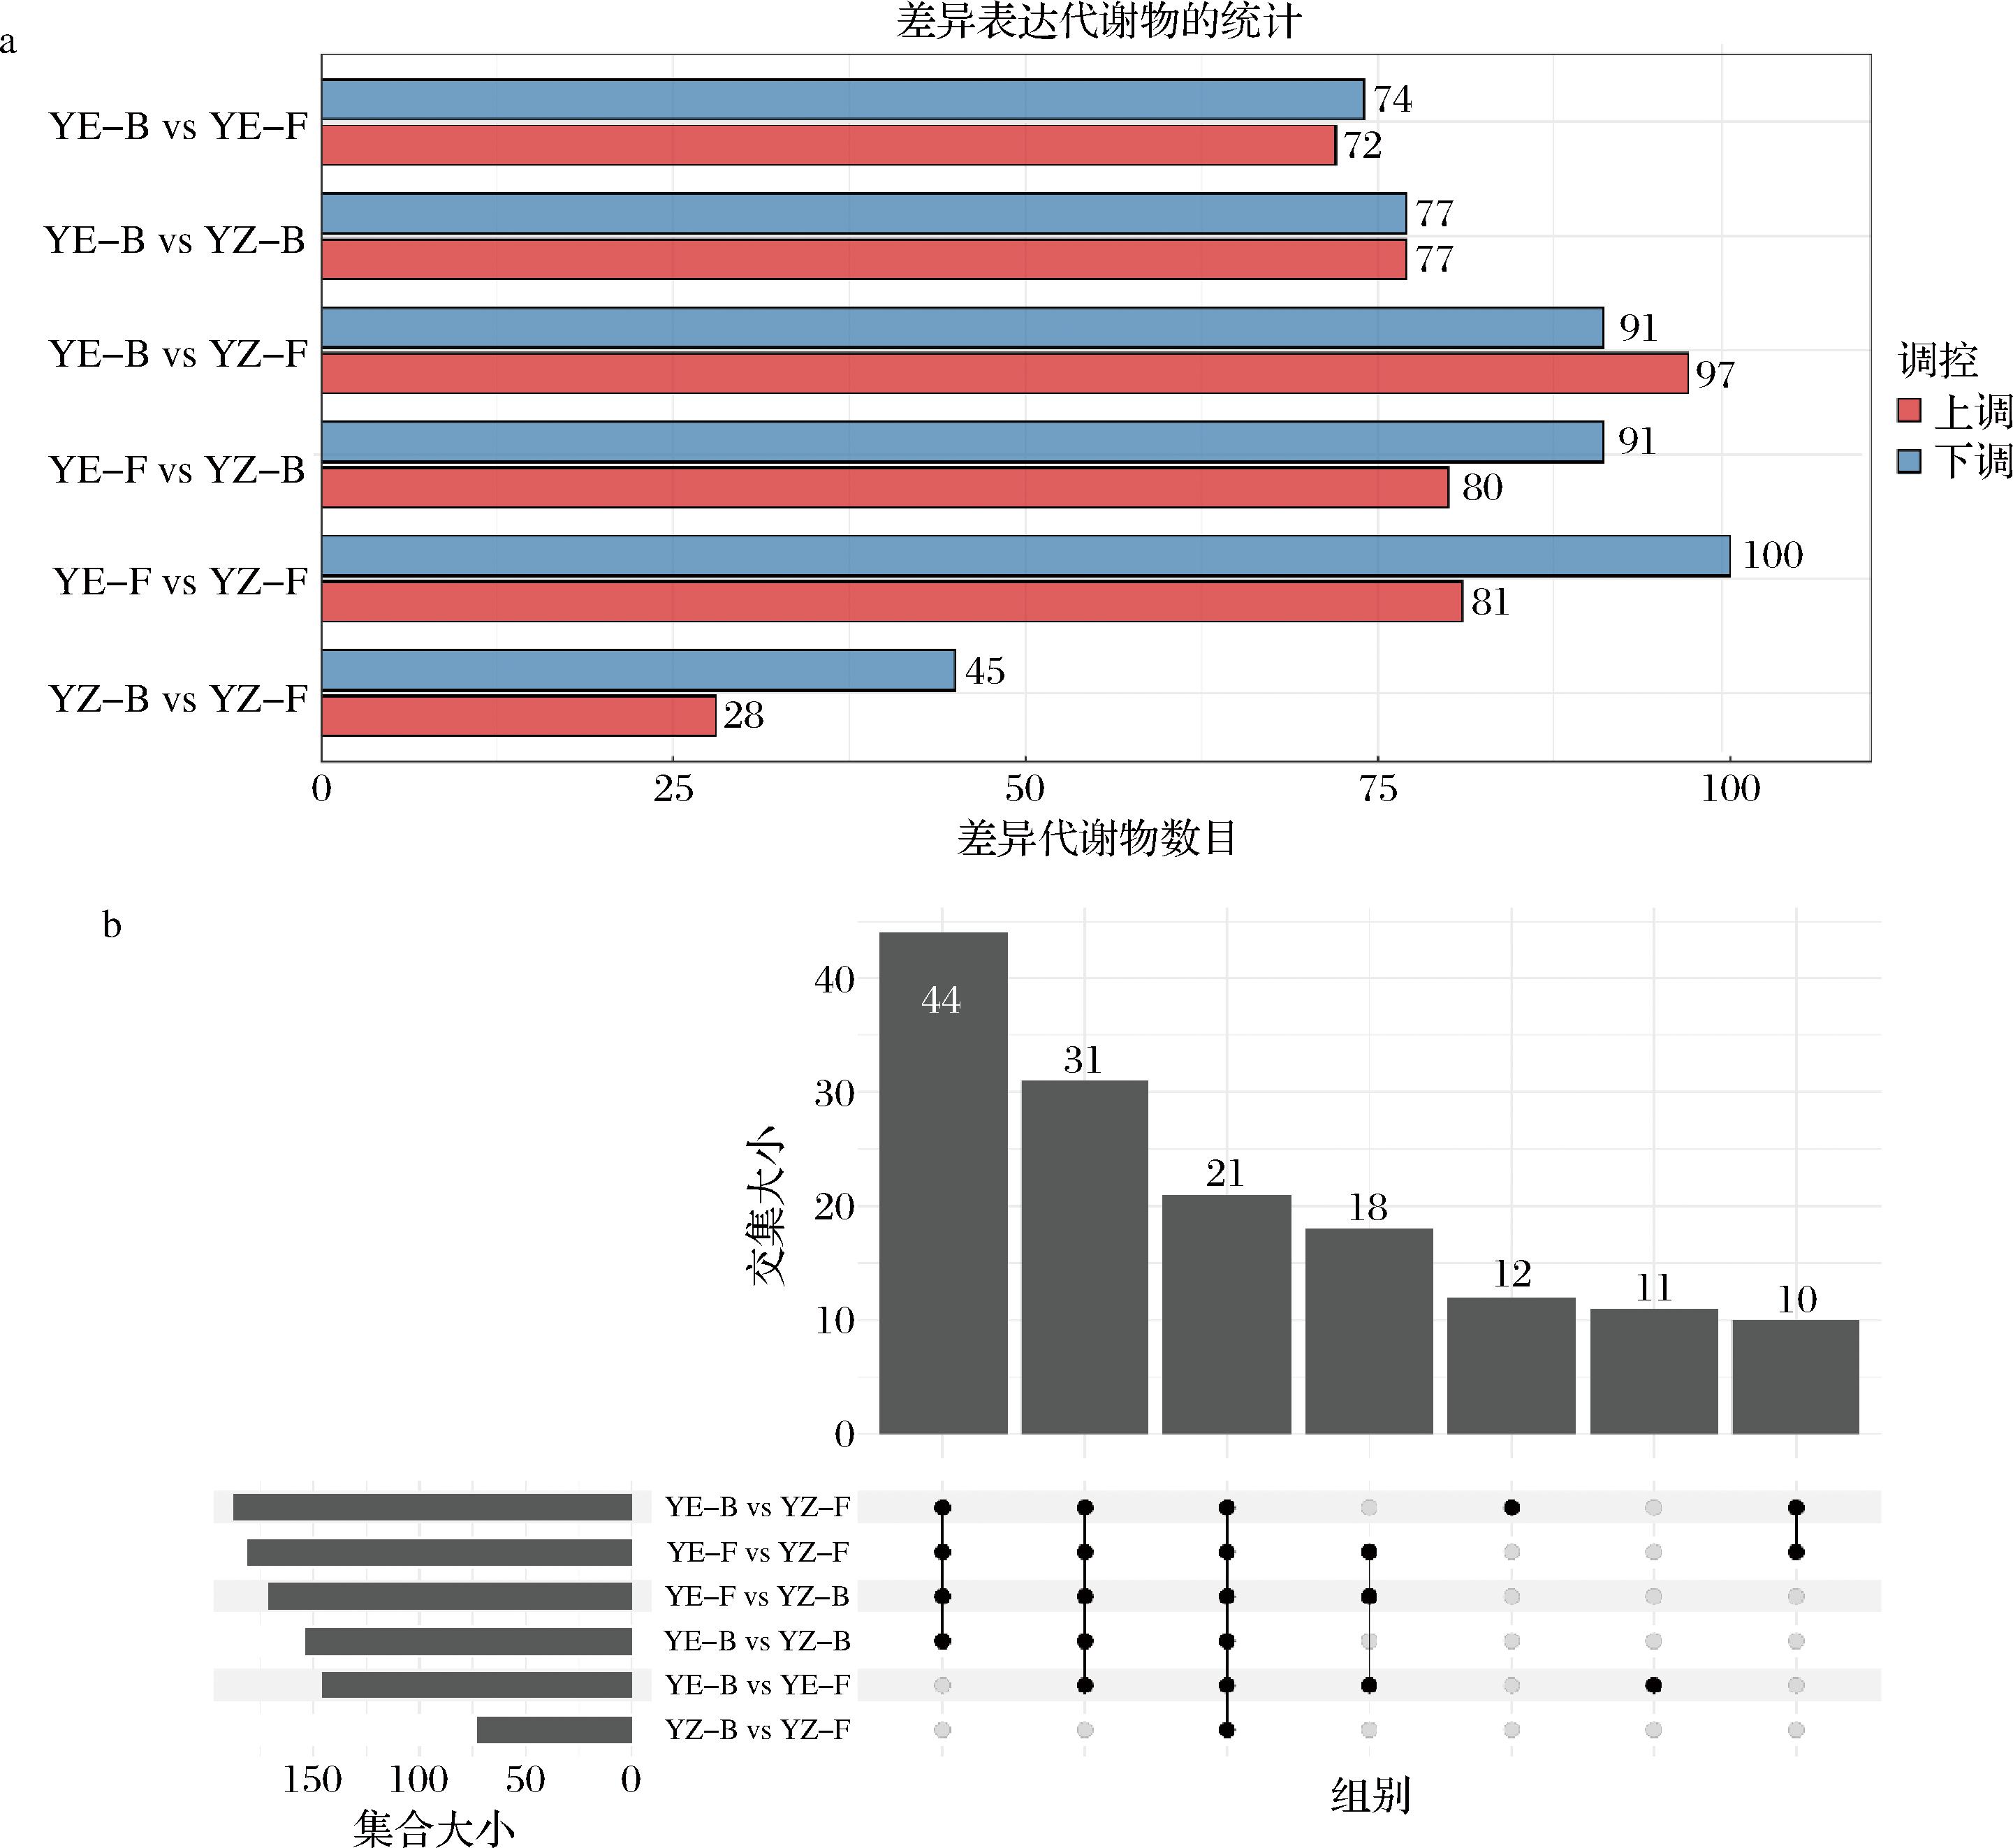
对经LC-MS鉴定的代谢物进行峰提取和定量后,依据二级谱图的碎片离子特征与数据库中标准谱图进比对,结合VIP>1且P<0.05判定筛选差异代谢物[13]。如图1-a所示,YE-B与YZ-F的差异代谢物数量最多(188种),其中上调97种、下调91种。说明腹部肌肉在代谢层面对生长环境表现更为敏感,相比之下,背部肌肉差异代谢物数量相对较少,表明背部肌肉可能在不同生境中表现出较强的代谢稳态[14]。这一现象可能与大黄鱼生境行为特征有关:野生大黄鱼需维持长距离游动能力,并需要应对觅食和逃避天敌等生态压力,其能量代谢及氨基酸转化通路更为活跃;而养殖环境下摄食来源稳定、活动强度较低,其肌肉代谢更偏向营养沉积与生长合成[4]。
a-柱形图;b-Venn图
图1 野生与养殖大黄鱼各组分间差异代谢物统计和Venn图
Fig.1 Statistical histograms and Venn plots of differences in metabolites between components of wild and cultured L.crocea
注:图中左侧柱形图表示不同比较组别的差异代谢物数目,右侧图表示在不同比较组中共有且特有的差异代谢物数目,点和连线表示该代谢物集合所对应的比较组。
a-ESI(+)模式;b-ESI(-)模式
图2 野生与养殖大黄鱼背部和腹部肌肉在ESI(+)和ESI(-)模式下的PCA得分图
Fig.2 PCA score plots of back and abdominal muscles of wild and cultured L.crocea under ESI (+) and ESI (-) modes
为进一步比较各组间代谢物的分布特征,构建Venn图分析差异代谢物的共性与特异性(图1-b)。野生大黄鱼和养殖大黄鱼背腹肌肉中有21种相同的差异代谢物,主要包括脂肪酸及其衍生物、酮类、酚类与芳香族代谢物等。这部分共性代谢物可能构成了大黄鱼肌肉品质形成过程中的基础代谢调控网络。此外,各对比组亦具有明显的特异代谢物,反映了不同生态环境与肌肉部位功能需求共同作用下的代谢响应差异(图1-a)。
2.2 野生与养殖大黄鱼背部和腹部代谢产物多元统计分析
2.2.1 主成分分析
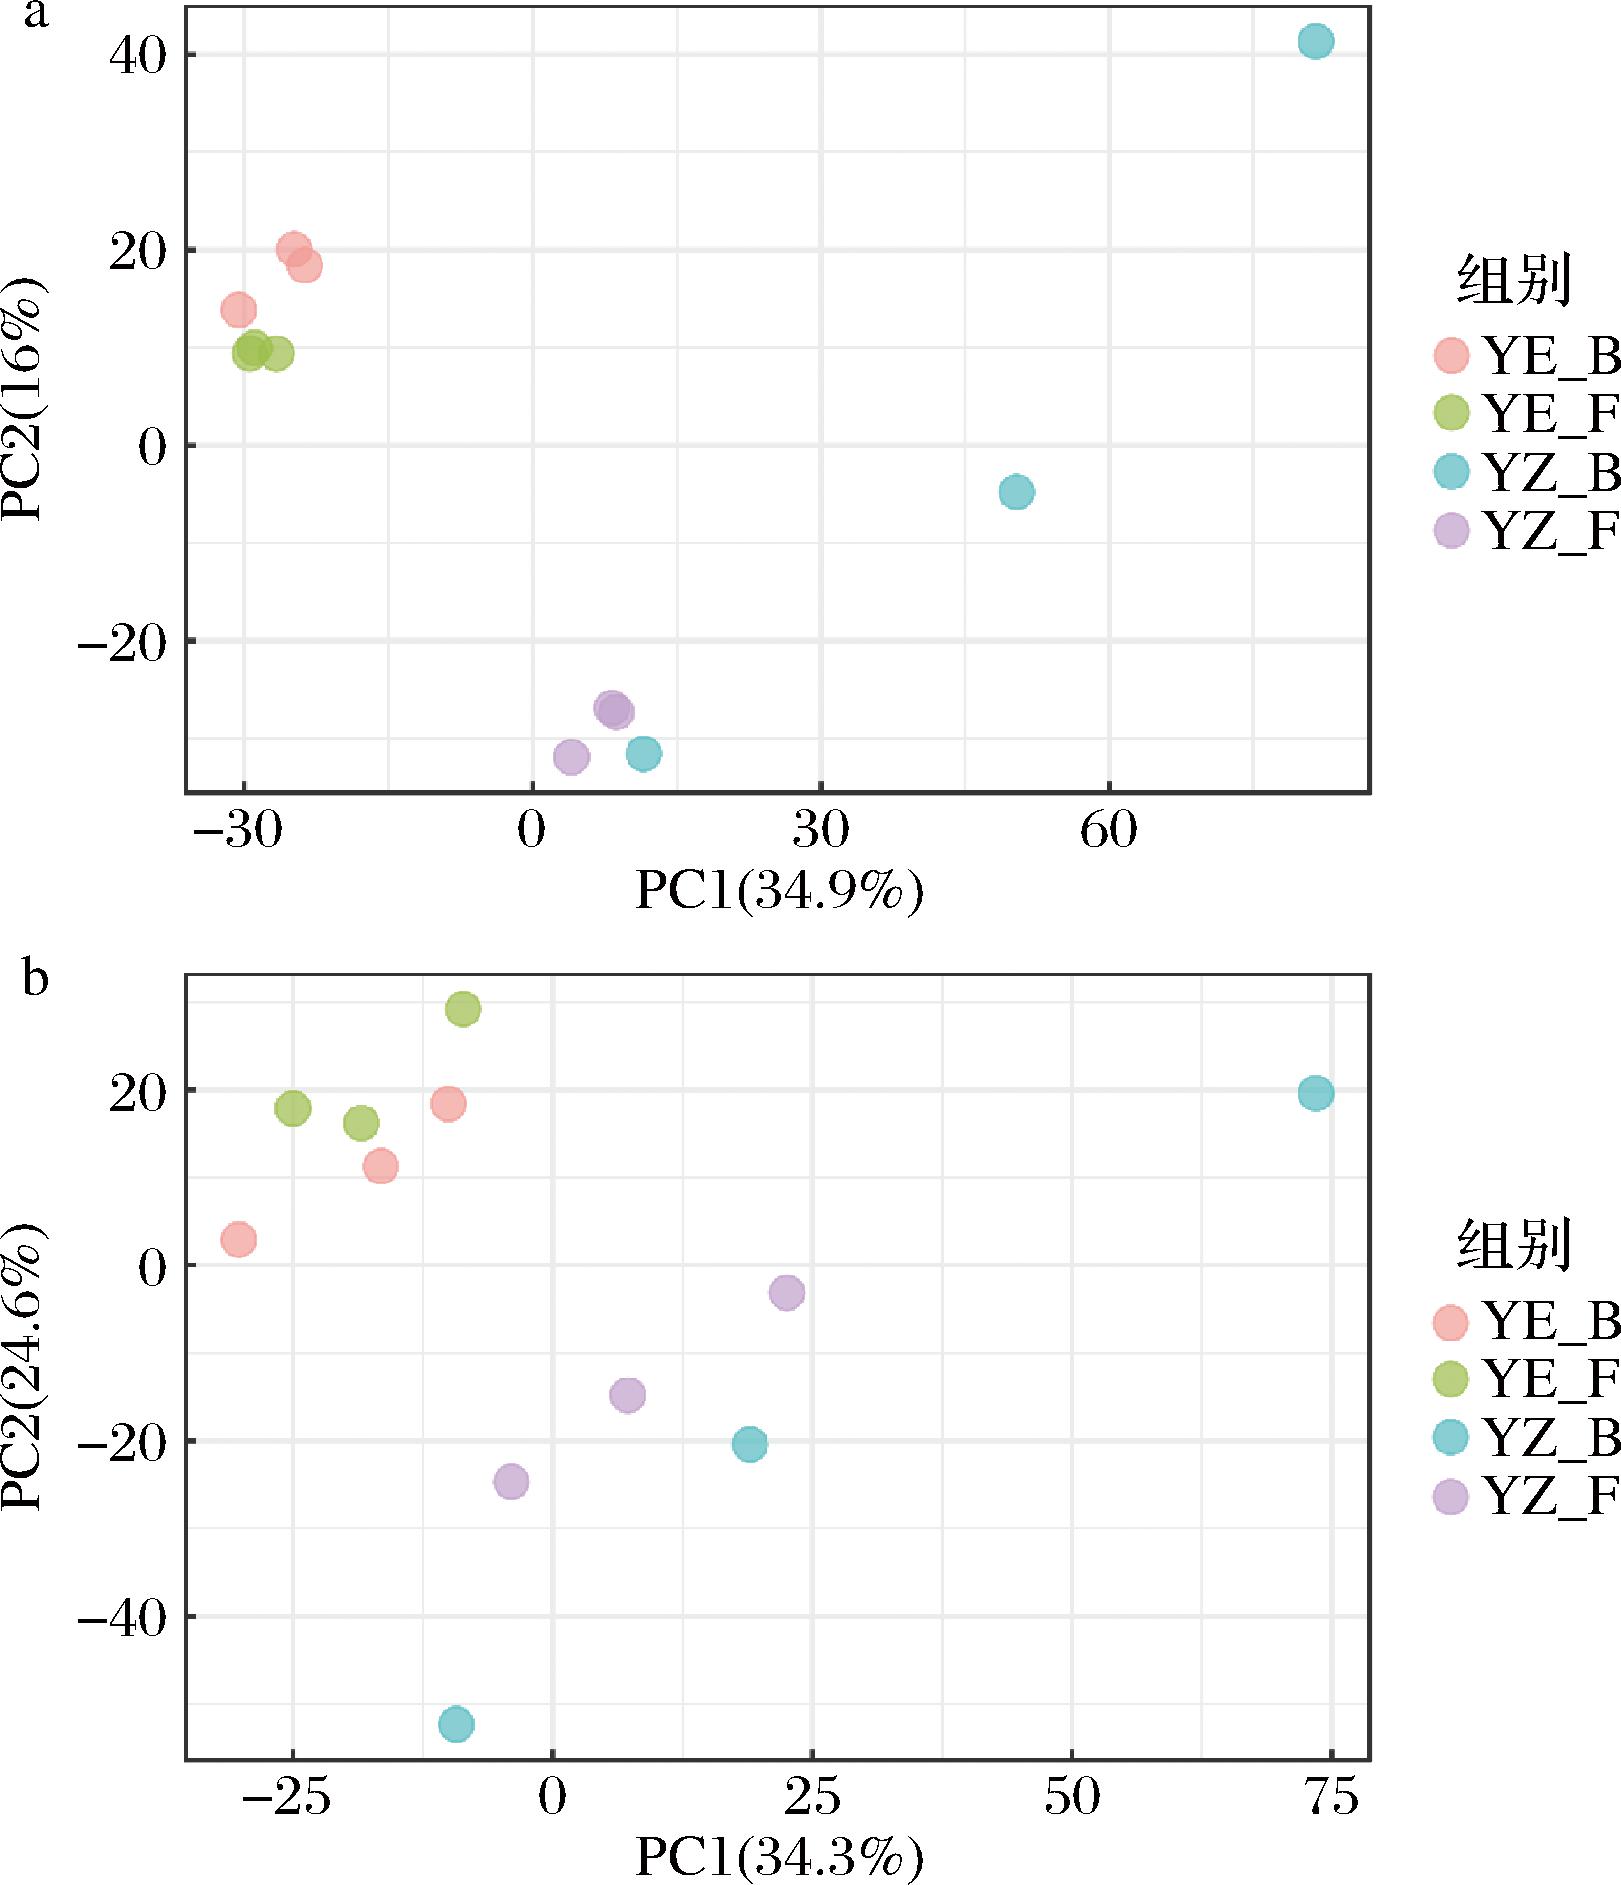
为考察代谢物整体分布差异,对野生与养殖大黄鱼背、腹部肌肉样品进行主成分分析(principal component analysis,PCA)。由图2可知,在ESI(+)模式下PCA总方差贡献率为50.9%,其中PC1方差贡献率达34.9%,PC2方差贡献率达16%(图2-a);在ESI(-)模式下PCA总方差贡献率为58.9%,PC1方差贡献率达34.3%,PC2方差贡献率达24.6%(图2-b),均大于50%,说明该模型能够较好地表征样本间的代谢差异。同一来源下背部与腹部样本的点位聚集较为紧密,表明同源个体不同肌肉部分的代谢差异相对较小。而野生与养殖样本之间的点位分布较为分散,呈明显分离趋势,说明生长环境(野生环境、人工养殖)差异是影响代谢组成变化的主要驱动因素。野生大黄鱼样本在PCA图中呈现出更高的聚集性,反映其代谢特征相对稳定,可能与野生环境下鱼类摄食资源天然、多样但长期进化形成较强代谢稳态有关。而养殖大黄鱼样本点位分布较为分散,可能由于个体在饲料摄入量、喂料频率及养殖密度等方面的差异,导致代谢水平波动更大[5]。
2.2.2 正交-偏最小二乘法判别分析
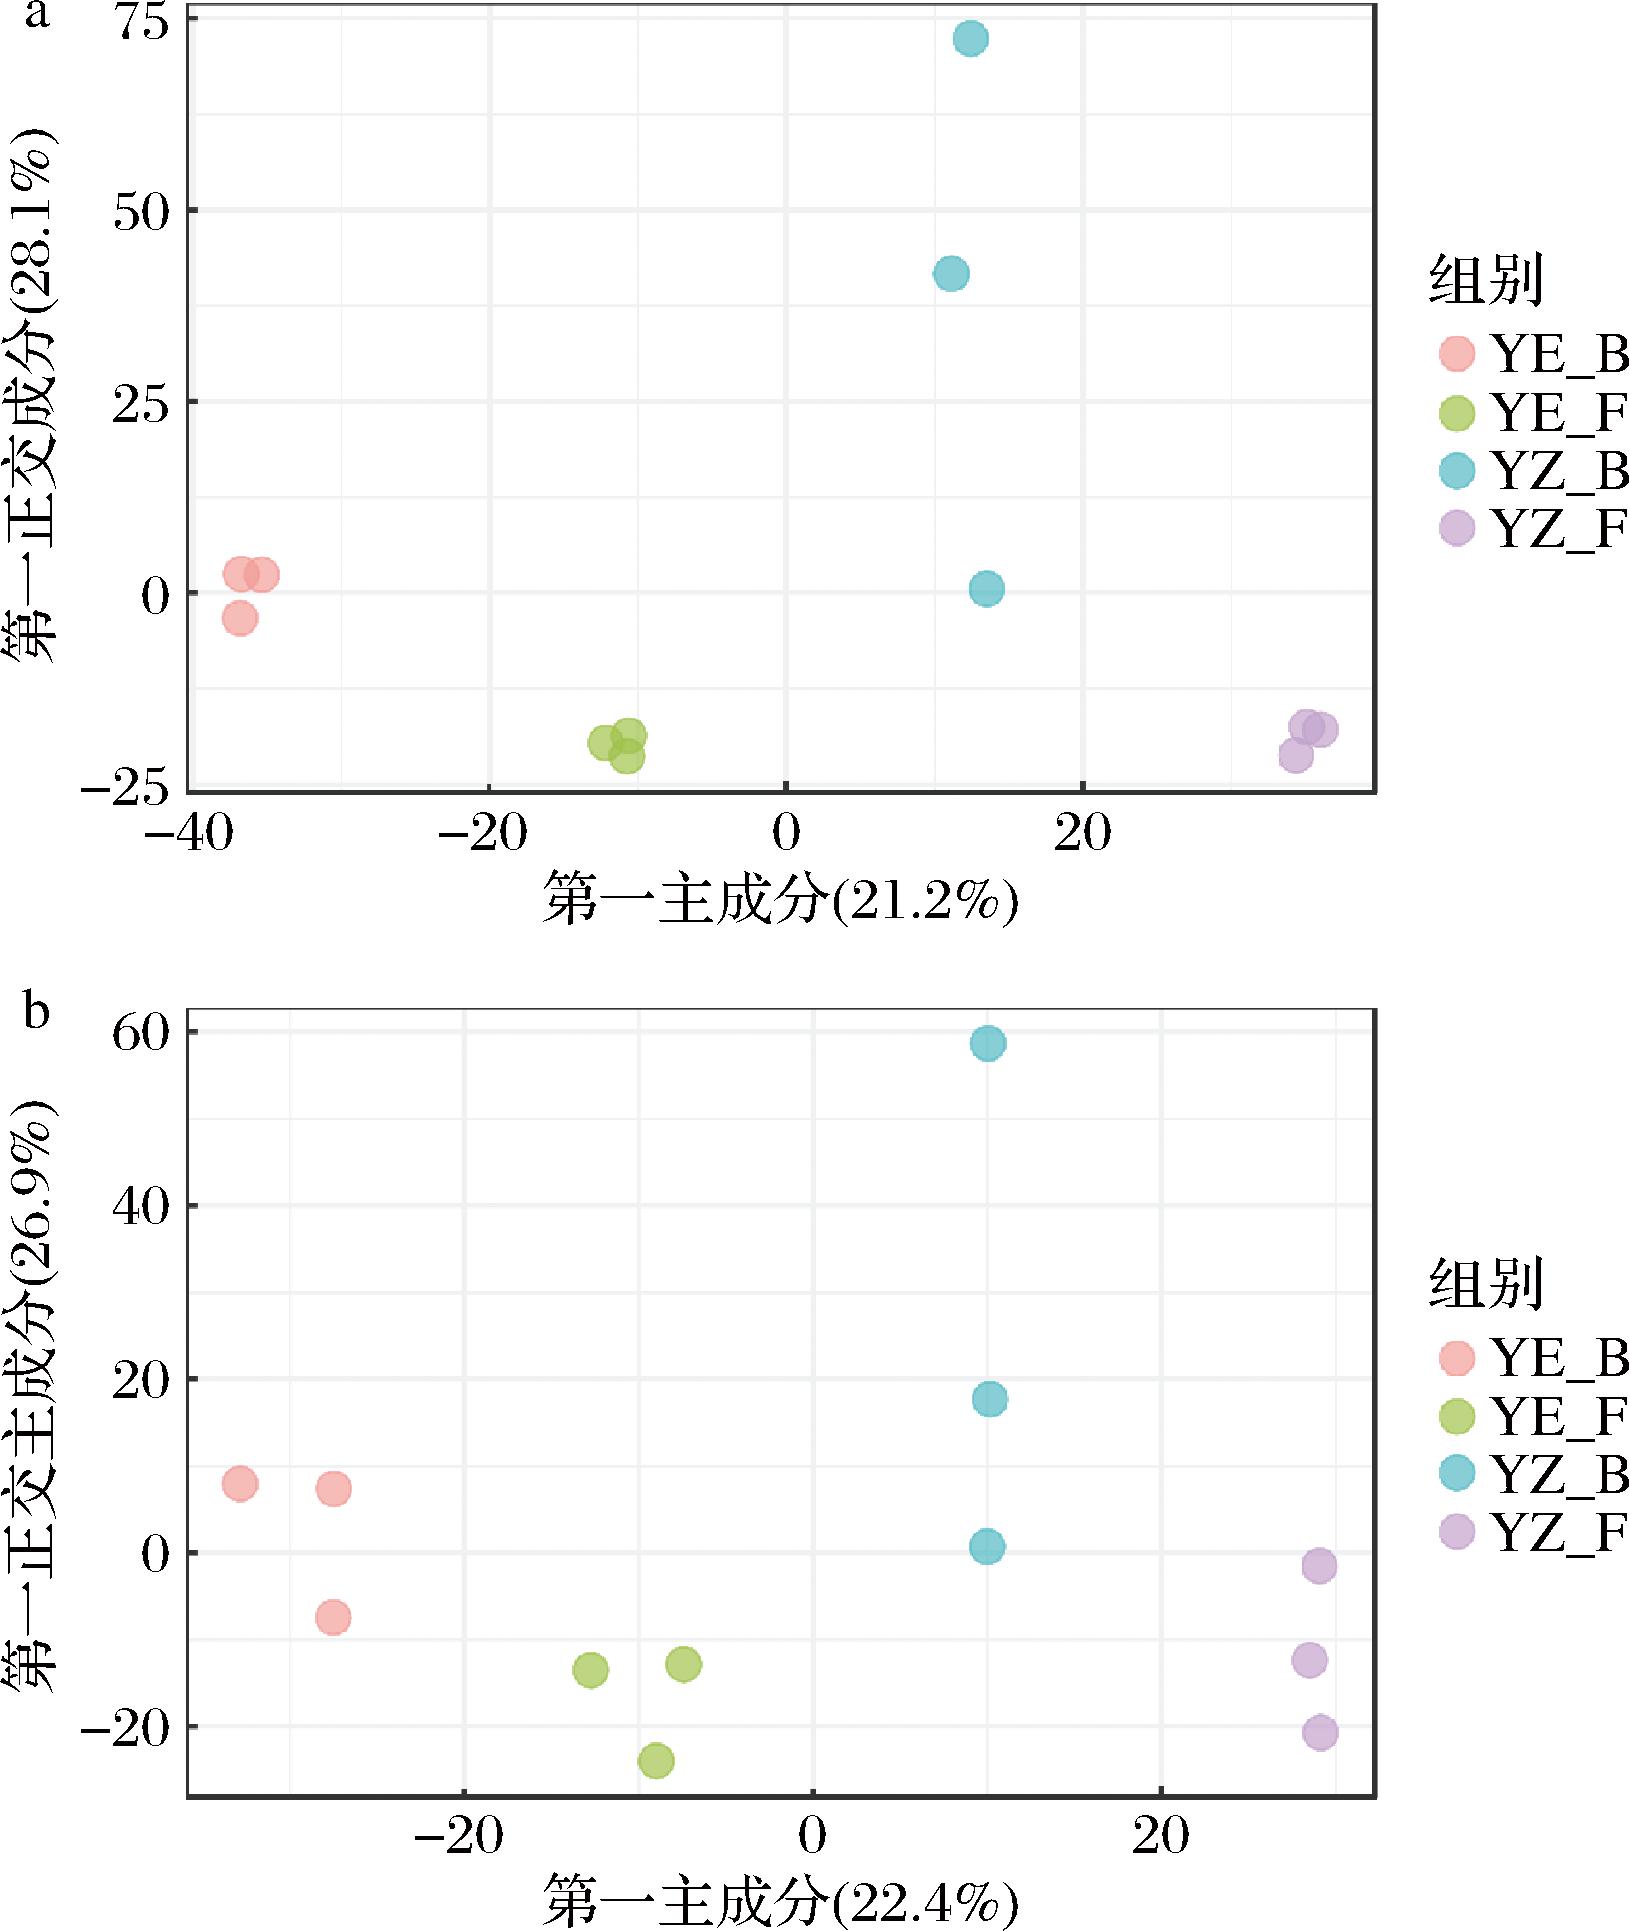
为进一步区分野生与养殖大黄鱼背部和腹部肌肉代谢特征差异,构建正交-偏最小二乘判别分析(orthogonal partial least squares discriminant analysis,OPLS-DA)对各组样品进行多元统计分析。OPLS-DA在保持模型预测能力的前提下,降低模型的复杂性和增强模型的解释能力,从而增强组间差异解释能力[15]。如图3可知,在ESI(+)和ESI(-)模式下,2种大黄鱼背腹部肌肉样品在得分图上呈现明显的空间分布差异,养殖大黄鱼背部在2种离子模式中均位于PC1正方向区域,与野生大黄鱼背腹部和养殖大黄鱼腹部在PC1和PC2维度上存在分离,且野生大黄鱼背腹部和养殖大黄鱼背腹部组内样本高度聚集、组间样本较分散,表明不同来源或部位间代谢调控通路存在差异。
a-ESI(+)模式;b-ESI(-)模式
图3 野生与养殖大黄鱼背部和腹部肌肉在ESI(+)和ESI(-)模式下OPLS-DA得分图
Fig.3 OPLS-DA score plots of back and abdominal muscles of wild and cultured L.crocea under ESI (+) and ESI (-) modes
模型质量评价结果显示,在ESI(+)模式下,R2X=0.601, R2Y=0.999, Q2=0.89;在ESI(-)模式下,R2X=0.711, R2Y=0.994, Q2=0.94。其中R、Q表征模型拟合优度和预测能力,R2和Q2均接近1,表明模型具有良好的拟合性能和较高的稳定性[16]。同时,2种离子模式下模型得分图中的组间分离方向存在差异,提示不同离子模式所捕获的代谢特征具有互补性。
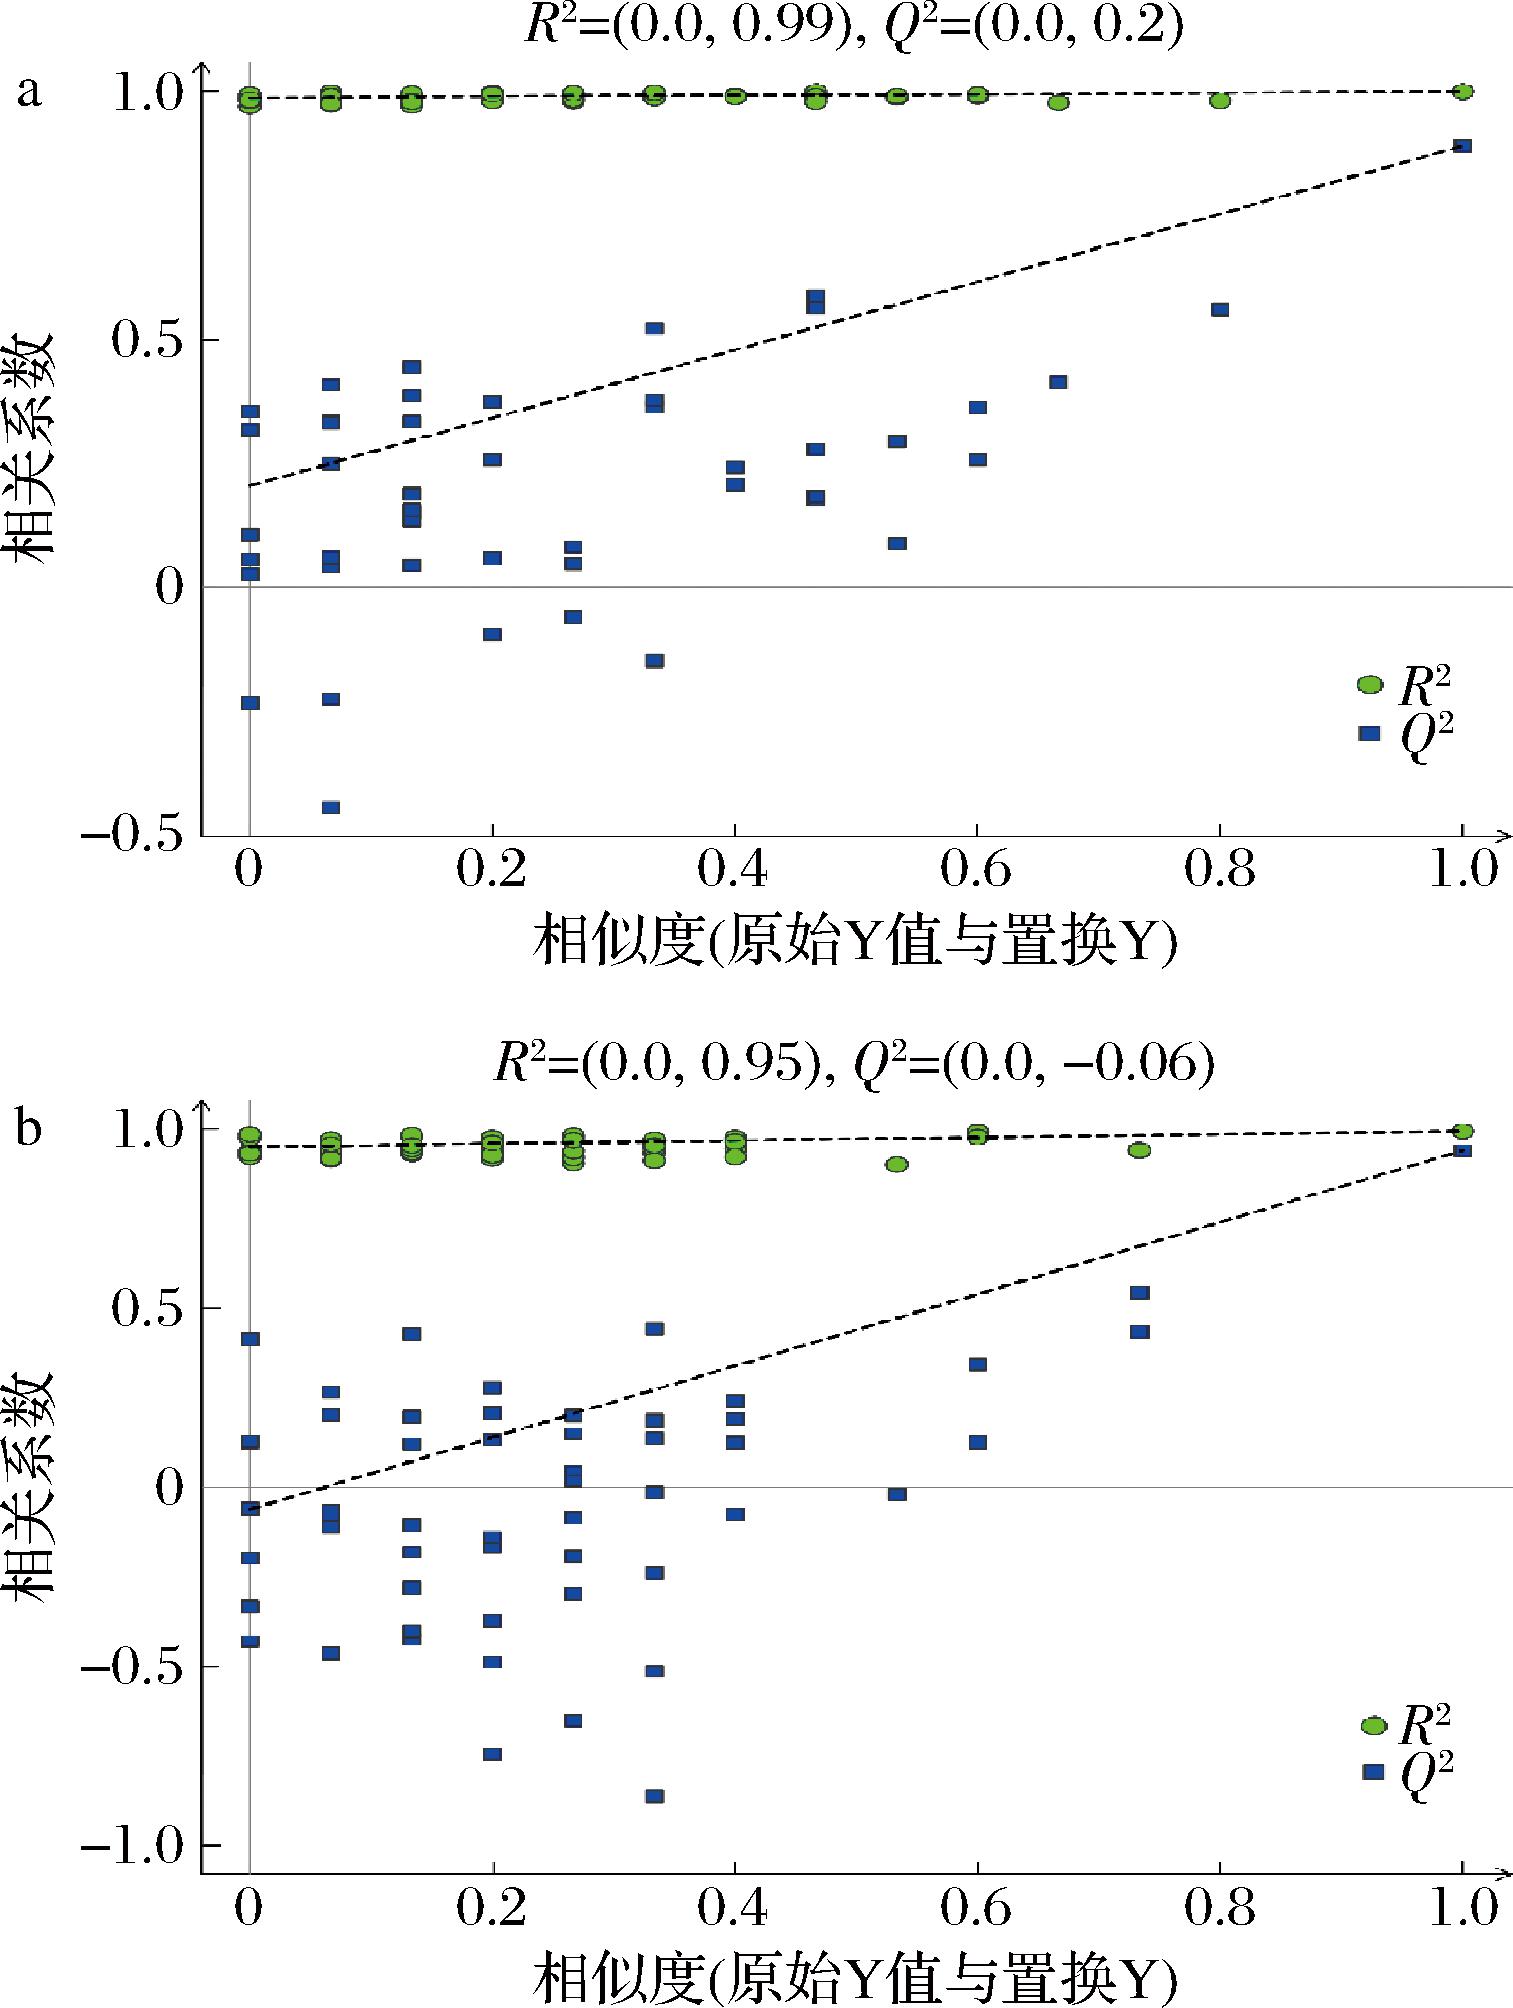
置换检验是OPLS-DA模型的重要质量控制步骤,通过对样本标签进行多次随机置换,比较原模型与置换模型的R2和Q2置换分布,可用于评估模型是否存在过拟合,并验证模型分类差异的统计学意义[17]。由图4可知,ESI(+)模式下,R2=0.99, Q2=0.2;在ESI(-)模式下,R2=0.95, Q2=-0.06。其中,较高的R2表明模型能够较好地拟合数据;而Q2值在2个模式下差异较大,说明不同离子模式下模型的预测能力存在差异。即ESI(+) 模式下模型具有一定的预测能力,而ESI(-)模式下Q2接近0,提示该模式下模型预测性能相对有限。尽管如此,2种模式下置换曲线均呈现Q2回归斜率为正且原模型位于置换模型右上侧的特征,说明组间差异并非由随机因素造成,分类趋势具有统计学意义[18]。
a-ESI(+)模式;b-ESI(-)模式
图4 野生与养殖大黄鱼背部和腹部肌肉ESI(+)和ESI(-)模式OPLS-DA置换检验图
Fig.4 Test map of OPLS-DA substitution of back and abdominal muscles of wild and cultured L.crocea under ESI (+) and ESI (-) modes
2.2.3 层次聚类分析
为进一步比较不同来源与不同肌肉部位样品的代谢特征,对差异代谢物进行聚类分析(见电子版增强出版附图1,https://doi.org/10.13995/j.cnki.11-1802/ts.045120,下同)。纵轴为差异不同代谢物,横轴为样品组别,颜色深浅表示不同相对含量水平(红色为含较量高,蓝色为含量较低)[19]。样品在聚类结果中呈现出明显的来源差异与部位差异双重分组特征,野生与养殖大黄鱼之间可被清晰区分,同一来源下背部与腹部样品同样表现出代谢特征的差异,说明环境因素与组织部位共同参与代谢调控过程。
进一步分析显示,2种大黄鱼背腹部肌肉中共存在94种差异代谢物。野生大黄鱼背腹部中共37种代谢物相对含量较高,多涉及氨基酸及其衍生物、能量代谢相关糖类及某些磷脂类物质;养殖大黄鱼背腹部中57种代谢物更为富集,主要包括部分脂肪酸及其酯类衍生物,反映体内代谢物在人工干预下的代谢特征。
在氨基酸代谢物中,顺式-4-羟基脯氨酸、(S)-α-氨基-4-羧基-3-呋喃丙酸、3-亚磺基丙氨酸等在野生大黄鱼中含量显著高于养殖大黄鱼(P<0.05)。其中顺式-4-羟基脯氨酸是胶原蛋白的重要组成部分,能够维持肌肉的结构和弹性[20],这与野生大黄鱼肌肉紧实和弹性更佳的感官特征相一致。而在养殖大黄鱼中L-天冬氨酸与L-丝氨酸相对含量较高(P<0.05),两者参与蛋白质合成、糖异生和核苷酸代谢,表明养殖条件下机体可能更偏向于生长促进与氮代谢再分配路径。
在脂类代谢中,野生大黄鱼中磷脂酰胆碱(36∶4, 18∶1/18∶4)及β-D-果糖6-磷酸含量较高,表明其肌肉代谢更接近天然摄食与能量转换路径[21]。养殖大黄鱼中对脂肪酸(尤其是20∶5代谢物)及磷脂类物质富集,反映出人工饲料中脂类与磷脂组分的供给可能对其肌肉代谢具有定向影响。此外,养殖大黄鱼体内中检测到红霉素、普伐他汀及N,N-二乙基间甲苯酰胺等,可能与养殖过程中的疾病防控用药或环境污染物暴露有关;而野生大黄鱼中未检测到此类物质。该结果表明养殖环节中的外源输入可能影响肌肉代谢表型,但其具体代谢效应仍需结合饲料与水体环境检测进一步验证。
综上,2种大黄鱼体内代谢物谱差异反映了自然生态与人工养殖环境下营养来源、运动行为及外源暴露等因素的综合作用。野生大黄鱼代谢特征更接近自然摄食和自主能量调控模式;养殖大黄鱼代谢特征则与饲料组成、生长促进调控及养殖环境密切相关。基于上述差异代谢物聚类特征的解析,为大黄鱼肌肉品质的分子水平评估、精准营养调控策略的制定提供了依据。
2.2.4 相关性分析
通过计算代谢物的皮尔逊相关系数,对代谢物间的协同变化关系进行分析,相关性系数介于-1与1之间,接近1表示代谢物在不同样品中呈一致变化趋势,接近-1表示二者呈相反变化趋势[22]。如附图2所示,野生与养殖大黄鱼背腹部肌肉中代谢物相关关系呈明显差异,揭示其代谢网络的调控模式并不相同。
在P<0.05的筛选标准下,野生与养殖大黄鱼中共鉴定到6 496种代谢物,其中正相关3 472种,负相关3 024种,说明2类大黄鱼肌肉中既存在协同调控的代谢路径,也存在拮抗调节的代谢分歧。如甲基吡咯烷酮、苯并咪唑、3-甲基苯甲醛在野生与养殖大黄鱼背腹部肌肉中呈正相关,表明其变化可能受相似代谢调控通路影响;而己二酸半醛、顺式-4-羟基脯氨酸、二乙基甲苯酰胺等呈负相关,表明其代谢过程受外源性环境因素或生理差异调节。
综上,相关性网络分析表明野生与养殖条件下肌肉代谢通路中存在系统性协同与差异性调控机制,为后续差异代谢物来源与生理功能解释提供了关联基础。
2.2.5 代谢通路分析
为探究差异代谢物的生物学功能,将显著差异代谢物映射至KEGG数据库进行富集分析[23],结果见图5。野生与养殖大黄鱼背腹部肌肉中的差异代谢物主要涉及氨基酸代谢、能量代谢、抗氧化调控及渗透稳态等14条代谢通路,反映其代谢差异受环境、营养和组织功能需求共同调控。

a-野生大黄鱼背部vs野生大黄鱼腹部;b-野生大黄鱼背部vs养殖大黄鱼背部;c-野生大黄鱼背部vs养殖大黄鱼腹部;d-野生大黄鱼腹部vs养殖大黄鱼背部;e-野生大黄鱼腹部vs养殖大黄鱼腹部;f-养殖大黄鱼背部vs养殖大黄鱼腹部
图5 野生与养殖大黄鱼背腹部肌肉差异代谢物的代谢通路富集气泡图
Fig.5 KEGG pathway enrichment bubble plot of differential metabolites in back and abdominal muscles of wild and cultured L.crocea
其中,精氨酸与脯氨酸代谢通路和蛋白质消化与吸收通路与肌肉结构蛋白更新和质构形成密切相关;L-丝氨酸与L-天冬氨酸在养殖样品中含量较高,提示其在蛋白合成和生长促进过程中发挥作用[24]。顺式-4-羟基脯氨酸在野生样品中含量较高,与胶原蛋白交联及肌肉弹性改善有关。在能量代谢方面,差异代谢物富集于糖酵解/糖异生通路、中心碳代谢通路及牛磺酸与亚牛磺酸代谢通路,提示野生大黄鱼具有更强的能量动员与抗氧化调节能力,而养殖条件下更偏向营养沉积与代谢效率提升[25]。
通过野生与养殖大黄鱼背腹部肌肉的对比发现,野生大黄鱼代谢特征偏向自主捕食、运动驱动的能量转换和应激调控路径;养殖大黄鱼代谢特征更趋于生长促进、营养沉积与饲料依赖型代谢重塑。该结果从分子水平说明了不同生境条件下肌肉质量差异与营养代谢策略的可能形成机制,明确了大黄鱼品质形成的关键代谢靶点。
2.2.6 调控网络分析
为明确差异代谢物之间的调控关系,基于 KEGG 通路构建了野生与养殖大黄鱼背腹部肌肉的代谢网络,以识别关键代谢节点并解析代谢分工特征[26]。各比较组筛选出10条主要代谢通路,主要涉及氨基酸代谢、能量代谢、硫代谢及环境适应等核心功能模块。
在野生大黄鱼背腹部 (图6-a),γ-谷氨酰-β-氰丙氨酸、乙醛与DL-苹果酸作为网络枢纽代谢物,分别代表渗透调节、能量补充和碳代谢中间体,说明背部更偏向能量动员,而腹部承担氨基酸转化与营养储存功能[17]。在野生与养殖大黄鱼背部中(图6-b),顺式-4-羟基脯氨酸、L-丝氨酸、L-脯氨酸位于氨基酸代谢主通路,反映野生鱼在胶原稳定和组织修复方面更活跃[27]。与阿南达胺、血栓素 A2等神经相关代谢物的差异,表明两者在运动强度与应激感受方面存在生态适应差异[28]。而养殖鱼在甘油醛-3-磷酸等糖酵解通路节点上显示下调,表明其能量代谢更依赖高脂饲料带来的脂肪氧化[20]。在野生与养殖鱼腹部(图6-c),L-天门冬氨酸、尸胺等代谢物构成氨基酸分解和氮代谢的中心节点,说明腹部肌肉在蛋白质分解和营养再分配中发挥重要作用。同时,牛磺酸与硫代谢通路差异表明野生鱼具备更强的抗氧化和渗透稳态调控能力。养殖鱼背腹部(图6-d),精氨酸和脯氨酸代谢、糖酵解/糖异生通路为主导,表明腹部肌肉在能量补偿中发挥中枢作用;而部分与二甲苯和氯代烷烃降解相关的小分子物质提示养殖环境中可能存在外源暴露。
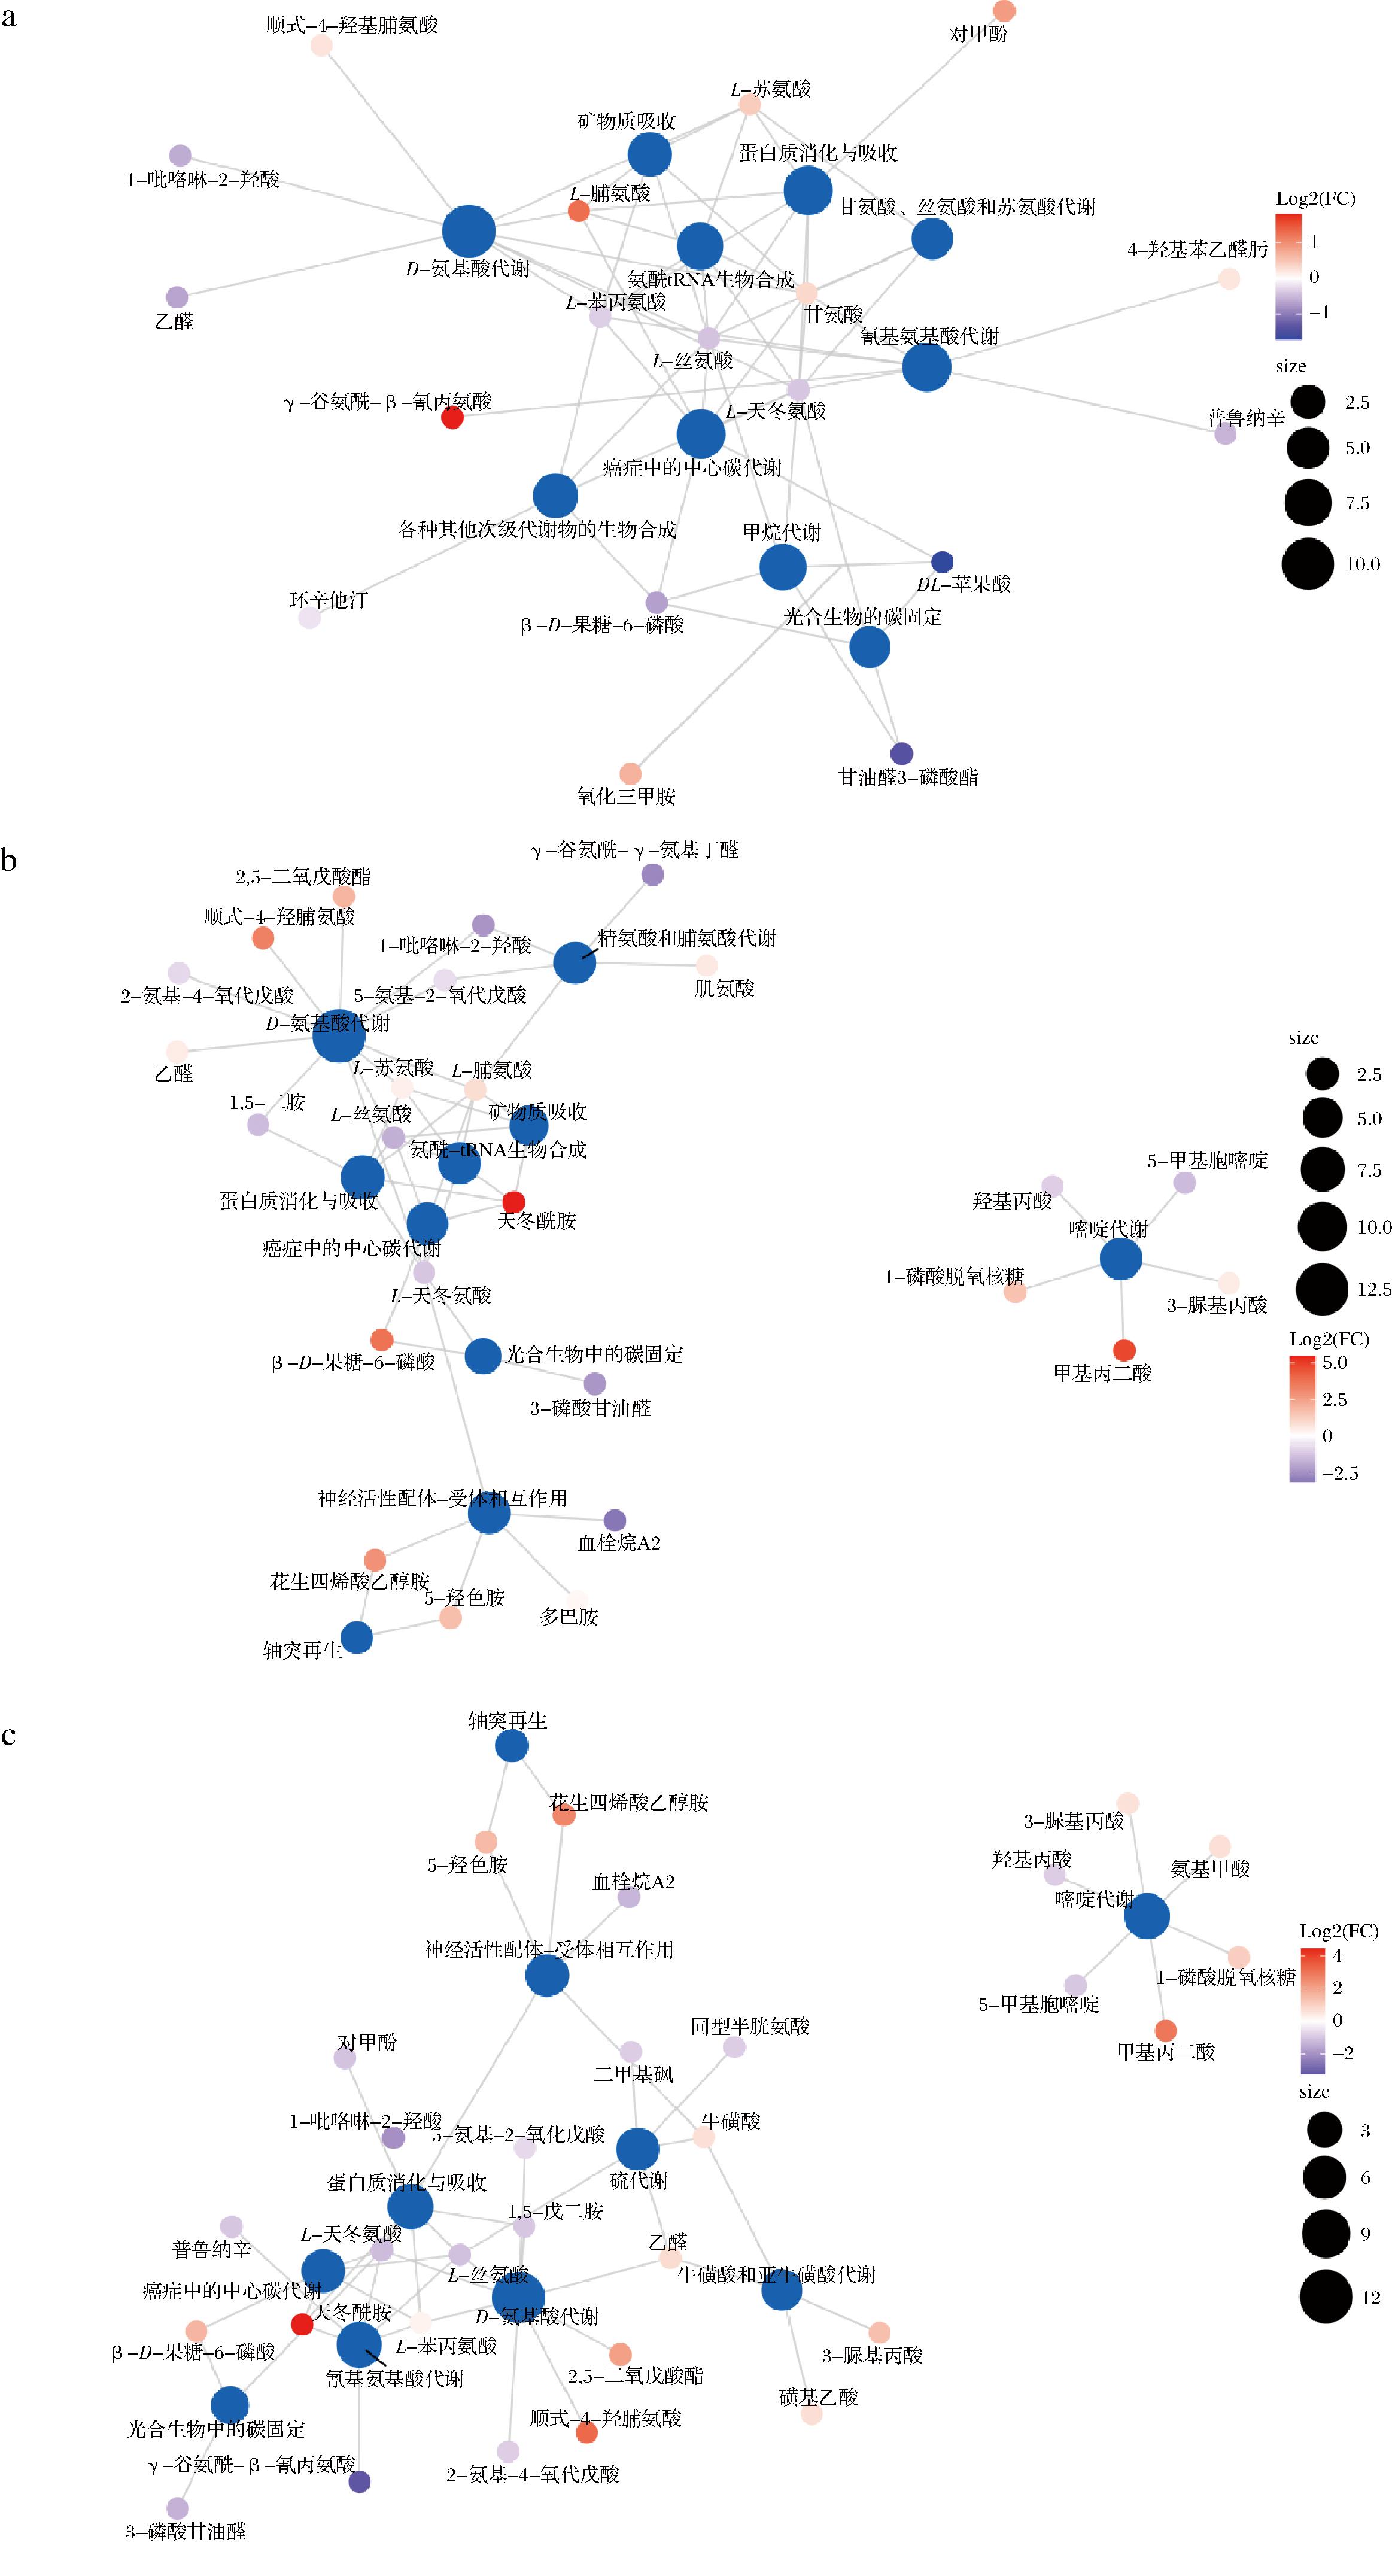
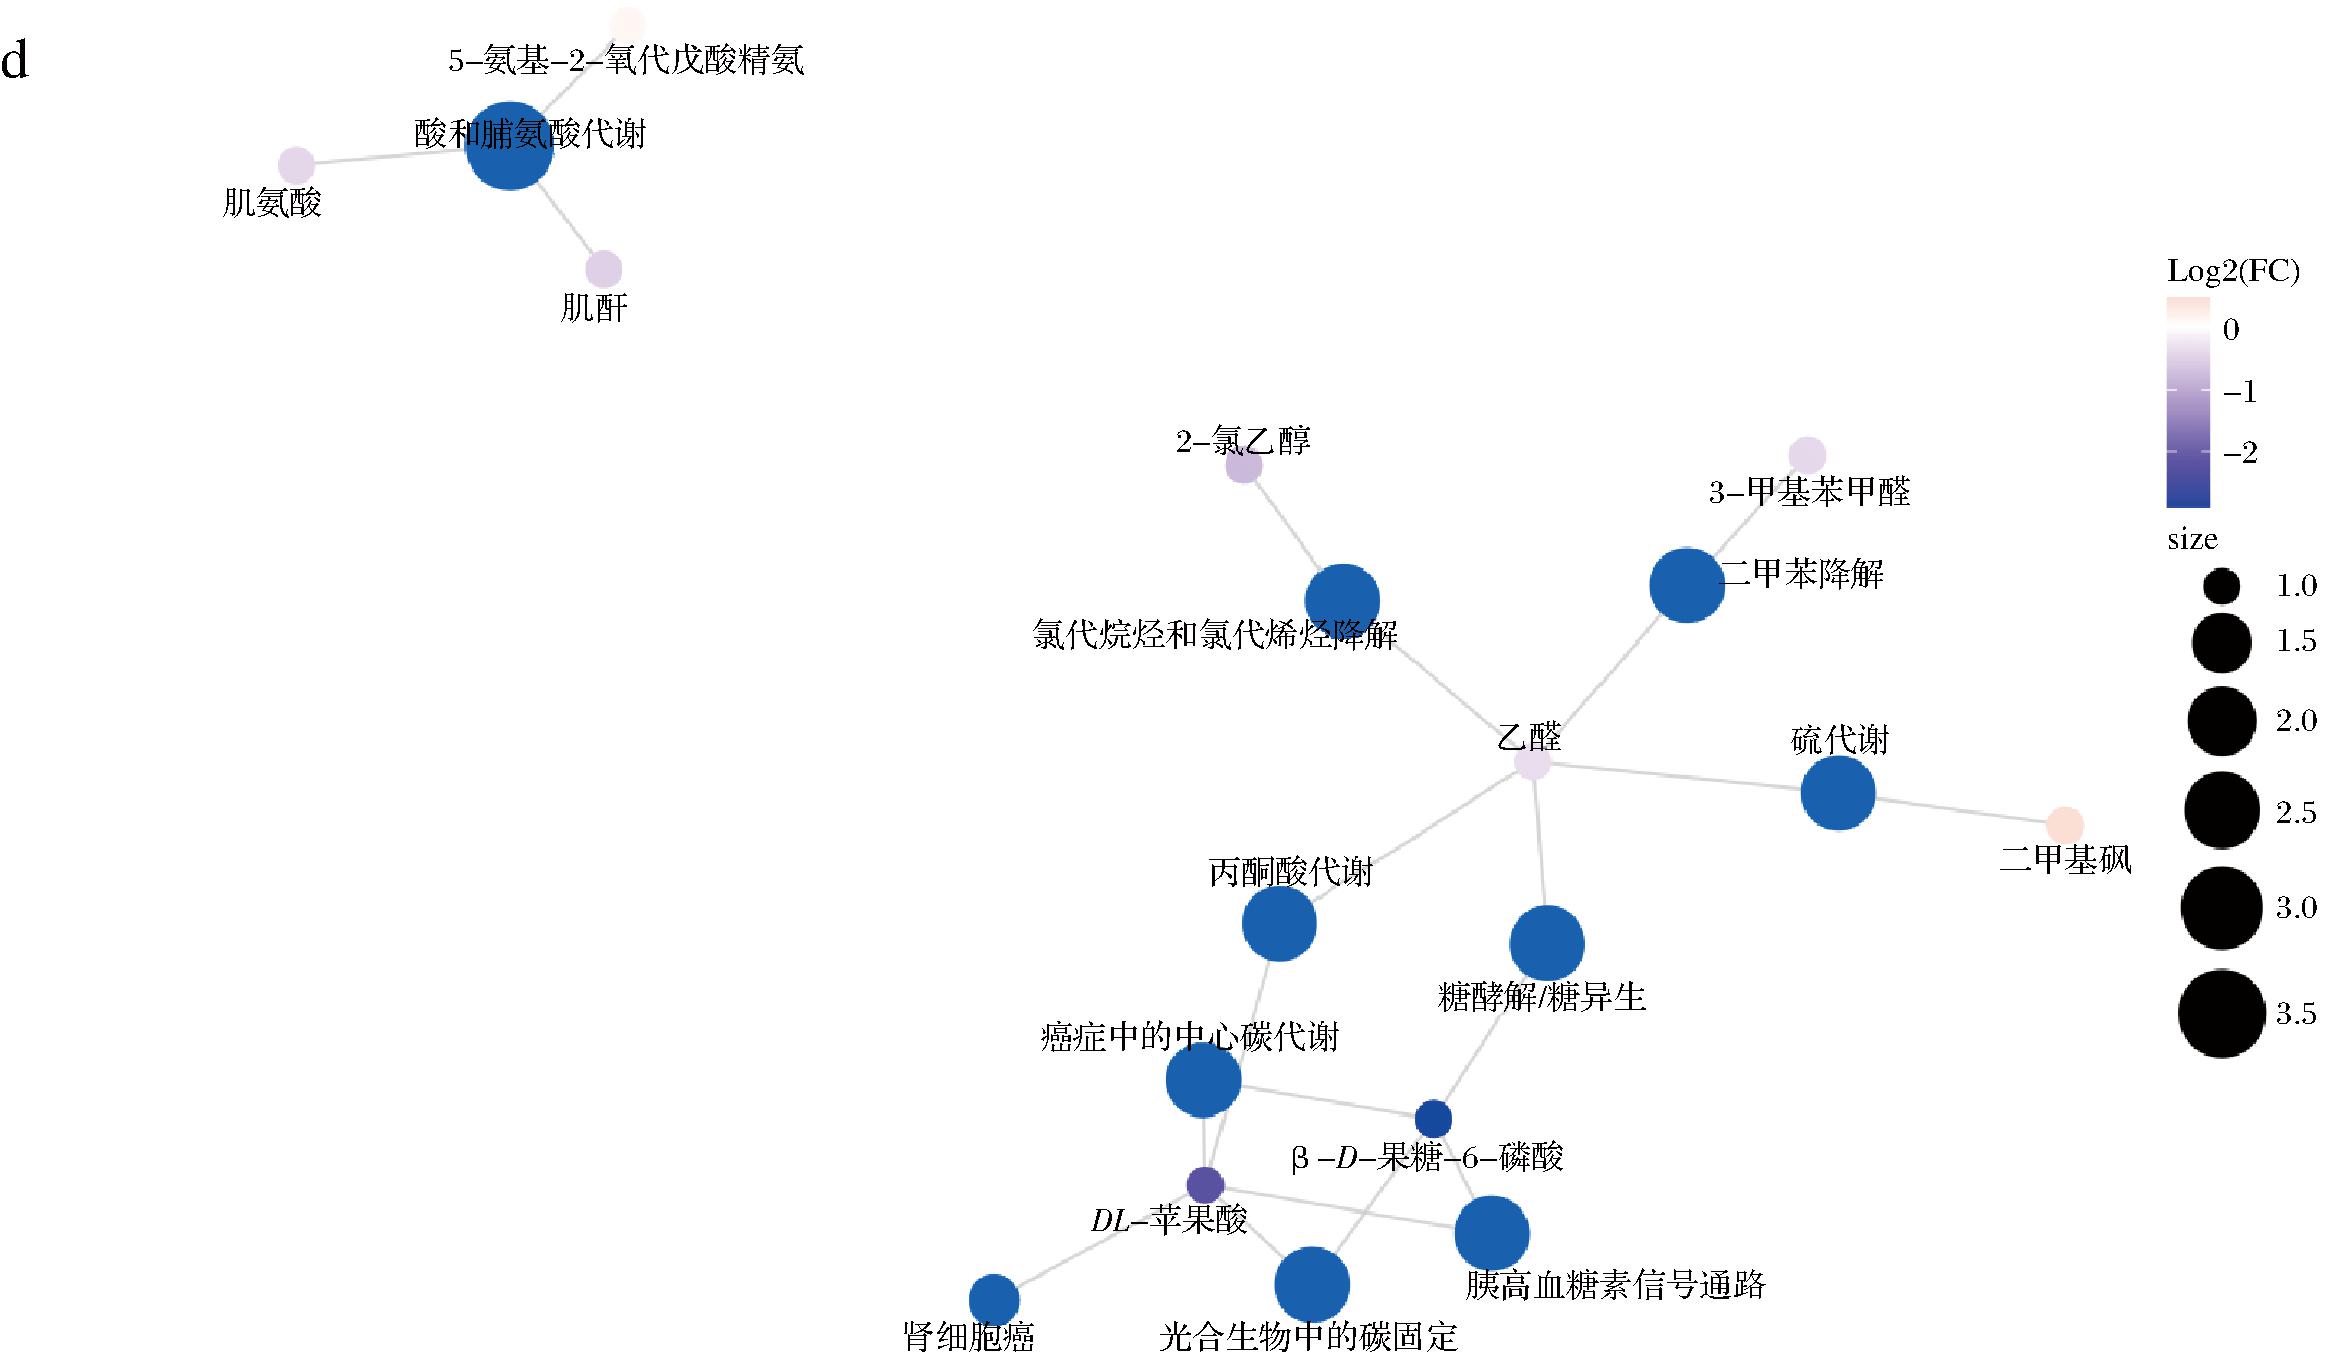
a-野生大黄鱼背部vs野生大黄鱼腹部;b-野生大黄鱼背部vs养殖大黄鱼背部;c-野生大黄鱼腹部vs养殖大黄鱼腹部;d-养殖大黄鱼背部vs养殖大黄鱼腹部
图6 野生与养殖大黄鱼各组分肌肉差异代谢物网络图
Fig.6 Differential metabolite networks of muscles of wild and cultured L.crocea
综上,野生大黄鱼以氨基酸代谢与能量高效利用为主要特征,而养殖大黄鱼则表现为糖代谢重塑和外源物质代谢增强的模式,反映2类个体在不同生态环境下形成了差异化的营养利用策略与代谢适应机制。
2.2.7 野生与养殖大黄鱼代谢差异的生理与生态学意义
结合本研究的代谢组特征可以看出,野生与养殖大黄鱼的代谢分化反映了不同生态环境下的能量分配与生理适应策略。野生大黄鱼在自然海域中需维持持续游动和应激应对,因此以氨基酸代谢与能量代谢协同活跃为主要特征。背部肌肉中甘油醛-3-磷酸、乙醛与 DL-苹果酸等能量中间体的增强,与大西洋鲑在洄游期间依赖糖酵解供能的机制一致[29],说明野生大黄鱼通过加速碳代谢以支持高强度运动需求。同时,顺式-4-羟基脯氨酸的显著富集有助于胶原稳定并增强肌肉弹性,与Joshi等[30]报道的野生鱼类因运动刺激而提升脯氨酸代谢的规律一致。腹部肌肉中牛磺酸含量较高则与自然环境波动下抗氧化与渗透稳态调控有关,这一特征在石斑鱼依赖牛磺酸应对温度与盐度变化的研究中也得到印证[31]。而养殖大黄鱼的代谢特征受饲料组成、养殖密度和环境管控的影响,其能量代谢向脂肪氧化和生长储能倾斜。β-D-果糖-6-磷酸活跃而甘油醛-3-磷酸下降,说明糖酵解部分减弱,与罗非鱼在人工饲料条件下能量分配向蛋白与脂肪沉积偏移的规律一致[32]。此外,养殖鱼体内部分外源性小分子与抗生素痕迹的检出,也反映了人工生态系统中“营养稳定但干扰更强”的特性,与深远海养殖鱼外源代谢物较少的研究形成对照[33]。
野生大黄鱼形成了“高运动—高能量利用—高抗氧化”的代谢模式,而养殖大黄鱼则体现“稳饵料—促生长—外源适应”的代谢策略。这些差异从生理、生态与人工干预3个层面共同构成了2类群体的代谢特征,为基于代谢靶点的养殖优化提供科学依据。
3 结论
研究从代谢组学角度分析了野生与养殖大黄鱼背部和腹部肌肉的代谢特征,结果显示,2类大黄鱼代谢差异显著,野生鱼背部(YE-B)与养殖鱼腹部(YZ-F)差异代谢物最多(188 种),PCA与OPLS-DA模型可有效区分且无过拟合,证实生长环境是代谢差异的核心驱动因素。野生鱼富集能够增强胶原蛋白交联以提升肌肉弹性的顺式-4-羟基脯氨酸、支撑运动能量供给的磷脂酰胆碱及强化抗氧化的牛磺酸等代谢物,且氨基酸与能量代谢通路活跃,适配自然环境中觅食、避敌的运动需求与环境胁迫应对;养殖鱼则以加速肌肉蛋白沉积的L-天冬氨酸、响应饲料脂类的脂肪酸衍生物为主,反映人工环境下的生理适应策略。本研究解析了不同来源和不同部位大黄鱼肌肉品质差异的分子代谢基础,为大黄鱼质量评价、养殖饲料精准配方设计及健康高品质养殖模式优化提供了理论依据。
[1] Zheng J L, Wan F G, Chen Y L, et al.Comparative study on the morphological characteristics, nutritional quality, and tastes of large yellow croaker from five cage culture areas:Relay farming improved fish quality[J].Aquaculture, 2024, 590:741030.
[2] 邹国华, 宋炜, 谢正丽.大黄鱼深远海大型围栏养殖技术[J].中国水产, 2021(6):57-60.Zou G H, Song W, Xie Z L.Advances in deep-sea large-scale enclosure farming techniques for Larimichthys croceas[J].China Fisheries, 2021(6):57-60.
[3] 李松, 郭全友, 李保国, 等.养殖模式和饵料对养殖大黄鱼体色、质构和营养成分评价的影响[J].食品与发酵工业, 2019, 45(21):118-125.Li S, Guo Q Y, Li B G, et al.Evaluation of culture mode and feed on body color, texture and nutritional composition of cultured Pseudosciaena crocea[J].Food and Fermentation Industries, 2019, 45(21):118-125.
[4] 陈志, 李水根, 许丽双, 等.深远海养殖大黄鱼肌肉品质分析与比较[J].福建农业科技, 2024, 55(11):25-31.Chen Z, Li S G, Xu L S, et al.Analysis and comparison of the muscle quality of Larimichthys croceas cultured in deep sea[J].Fujian Agricultural Science and Technology, 2024, 55(11):25-31.
[5] 石钰琢, 郭全友, 郑尧, 等.不同养殖模式及流通方式的大黄鱼品质评价和等级判定[J].食品科学, 2022, 43(13):184-191.Shi Y Z, Guo Q Y, Zheng Y, et al.Quality evaluation and grading of pseudosciaena crocea cultured in different aquaculture modes and circulated under different conditions[J].Food Science, 2022, 43(13):184-191.
[6] 李国道, 徐昙烨, 朱丹妮, 等.代谢组学在水产品品质研究中的应用进展[J].广东海洋大学学报, 2023, 43(5):119-125.Li G D, Xu T Y, Zhu D N, et al.Progress in application of metabolomics in the study of aquatic product quality[J].Journal of Guangdong Ocean University, 2023, 43(5):119-125.
[7] 高淑芳, 张金鹏, 施永海, 等.基于LC-MS技术的海、淡水养殖刀鲚卵巢的代谢组学比较分析[J].南方水产科学, 2022, 18(3):68-75.Gao S F, Zhang J P, Shi Y H, et al.Metabonomics analysis of ovaries of Coilia nasus in seawater and freshwater based on liquid chromatography-mass spectrometry[J].South China Fisheries Science, 2022, 18(3):68-75.
[8] Liu Z Y, Xiao N Y, Qin L, et al.Insights into volatile substance changes of tilapia fillets before and after steaming and boiling during refrigeration based on metabolomics[J].Food Chemistry, 2025, 493:145856.
[9] Cheng R, Ying Z Q, Yang Y, et al.Changes of intestinal microbiota and liver metabolomics in yellow catfish (Pelteobagrus fulvidraco) before and after rice flowering in rice-fish symbiosis farmed mode[J].Frontiers in Microbiology, 2025, 16:1617168.
[10] Dunn W B, Broadhurst D, Begley P, et al.Procedures for large-scale metabolic profiling of serum and plasma using gas chromatography and liquid chromatography coupled to mass spectrometry[J].Nature Protocols, 2011, 6(7):1060-1083.
[11] Zelena E, Dunn W B, Broadhurst D, et al.Development of a robust and repeatable UPLC-MS method for the long-term metabolomic study of human serum[J].Analytical Chemistry, 2009, 81(4):1357-1364.
[12] Want E J, Masson P, Michopoulos F, et al.Global metabolic profiling of animal and human tissues via UPLC-MS[J].Nature Protocols, 2013, 8(1):17-32.
[13] Saccenti E, Hoefsloot H C J, Smilde A K, et al.Reflections on univariate and multivariate analysis of metabolomics data[J].Metabolomics, 2014, 10(3):361-374.
[14] Zheng J L, Chen Y L, Wan F G, et al.Comparative study on the quality of wild and ecologically farmed large yellow croaker through on-site synchronous sampling from the Nanji Archipelago in the East China Sea[J].Aquaculture, 2024, 591:741098.
[15] 杨航, 袁泉, 吕巍巍, 等.基于非靶向代谢组学分析野生和养殖黄鳝肌肉的代谢差异[J].上海农业学报, 2025, 41(5):16-25.Yang H, Yuan Q, Lü W W, et al.Metabolic differences between wild and farmed Monopterus albus muscle analyzed by untargeted metabolomics[J].Acta Agriculturae Shanghai, 2025, 41(5):16-25.
[16] Chu Y M, Wang J F, Xie J.Foodomics in aquatic products quality assessment during storage:An advanced and reliable approach[J].Food Bioscience, 2024, 58:103734.
[17] Du H Y, Xiong S B, Lv H, et al.Comprehensive analysis of transcriptomics and metabolomics to understand the flesh quality regulation of crucian carp (Carassius auratus) treated with short term micro-flowing water system[J].Food Research International, 2021, 147:110519.
[18] Zhuang J C, Wang Y C, Shen W L, et al.Evaluating dynamic effects of dietary glycerol monolaurate on the productive performance and flesh quality of large yellow croaker (Larimichthys crocea)[J].Food Chemistry, 2022, 387:132833.
[19] Wang Y, Li W Q, Zhang C, et al.Metabolomic comparison of meat quality and metabolites of geese breast muscle at different ages[J].Food Chemistry:X, 2023, 19:100775.
[20] Cheng H, Mei J, Xie J.The odor deterioration of tilapia (Oreochromis mossambicus) fillets during cold storage revealed by LC-MS based metabolomics and HS-SPME-GC-MS analysis[J].Food Chemistry, 2023, 427:136699.
[21] Zheng Y, Wang X C.Adequate pre-freezing handling slows the quality deterioration of frozen obscure pufferfish:Revealed by untargeted metabolomics[J].Food Research International, 2023, 173:113423.
[22] Rao G D, Sui J K, Zhang J G.Metabolomics reveals significant variations in metabolites and correlations regarding the maturation of walnuts (Juglans regia L.)[J].Biology Open, 2016, 5(6):829-836.
[23] Enkerlin A, Hoffmann U A, Rapp J, et al.Deciphering the metabolic details of L-lysine toxicity in cyanobacteria[J].Plant Physiology,2026,200(4):kiag106.
[24] Qiu L L, Huang Q Q, Li W H, et al.Aging influences protein digestion, absorption and amino acid metabolism[J].Biogerontology, 2025, 26(4):146.
[25] Zeng L, Wang Y H, Ai C X, et al.Different cold tolerances among three strains of large yellow croaker:Related to antioxidant defense and energy metabolism[J].Fish Physiology and Biochemistry, 2023, 49(3):471-486.
[26] 周奎, 王润东, 宫梦学, 等.冷鲜波动温度对生食三文鱼肌肉代谢物的影响[J].食品科学, 2024, 45(22):229-238.Zhou K, Wang R D, Gong M X, et al.Effect of temperature fluctuations during chilled storage on the metabolite composition of salmon consumed raw[J].Food Science, 2024, 45(22):229-238.
[27] Xu C C, Zang M W, Qiao X L, et al.Effects of ultrasound-assisted thawing on lamb meat quality and oxidative stability during refrigerated storage using non-targeted metabolomics[J].Ultrasonics Sonochemistry, 2022, 90:106211.
[28] Li Z D, Qi F Y, Li F.Integrating 16S sequencing and metabolomics study on anti-rheumatic mechanisms against collagen-induced arthritis of Wantong Jingu Tablet[J].Chinese Journal of Natural Medicines, 2022, 20(2):120-132.
[29] Bombardier E, Booth R K, Green H J, et al.Metabolic adaptations of oxidative muscle during spawning migration in the Atlantic salmon Salmo salar L[J].Fish Physiology and Biochemistry, 2010, 36(3):355-365.
[30] Joshi A, Basak T, Mondal B.Decoding elegant interplay among different stereo-electronic effects due to the ancient prolyl-4-hydroxylation stabilizing collagenous helicity[J].iScience, 2025, 28(5):112393.
[31] 米红波, 鹿悦, 陈敬鑫, 等.牛磺酸和谷氨酰胺对石斑鱼的应激缓解作用[J].水产科学, 2024, 43(6):865-874.Mi H B, Lu Y, Chen J X, et al.Stress relieving effect of taurine and glutamine on grouper hybrid[J].Fisheries Science, 2024, 43(6):865-874.
[32] 刘伟, 蒋明, 吴凡, 等.饲料能量密度和投喂水平对吉富罗非鱼生长和健康的影响[J].水生生物学报, 2022, 46(1):58-68.Liu W, Jiang M, Wu F, et al.Effects of dietary energy density and feed ration on growth and health in genetically improved farmed tilapia, Oreochromis niloticus[J].Acta Hydrobiologica Sinica, 2022, 46(1):58-68.
[33] 李媛洁, 陈作志, 张俊, 等.南海珊瑚礁海域蜂巢石斑鱼生物学特征研究[J].南方水产科学, 2021, 17(6):22-30.Li Y J, Chen Z Z, Zhang J, et al.Biological characteristics of Epinephelus merra of coral reef waters in South China Sea[J].South China Fisheries Science, 2021, 17(6):22-30.