腹泻至今仍是全球范围内重大的公共卫生负担,严重威胁婴幼儿、旅行者及免疫功能低下人群的健康安全[1]。其中,产肠毒素大肠杆菌(enterotoxigenic Escherichia coli, ETEC)是引发腹泻的主要病原体之一[2]。由于抗生素耐药性问题日益严峻[3],利用益生菌特别是乳酸菌进行生物防治,已成为替代抗生素、维护肠道稳态的关键路径[4]。
乳酸片球菌(Pediococcus acidilactici)作为一种极具潜力的益生菌,在抑制病原菌生长及胃肠道定植方面表现卓越[5-6]。然而,自然界筛选的野生株往往存在抑菌活性不足、复杂肠道环境下稳定性差等瓶颈,难以满足高标准的应用需求[7]。因此,如何高效提升乳酸片球菌的抑菌效力并筛选出具备优良益生潜质的突变株,是当前功能性益生菌开发的研究重点。常压室温等离子体(atmospheric and room temperature plasma, ARTP)诱变技术以其高突变率、操作简便及遗传稳定性好等优势,为微生物的定向进化提供了高效手段[8-9]。已有大量研究表明,ARTP诱变处理后,菌株的生长性能、代谢活性及抗菌活性等性能显著提升[10-12]。
本研究利用ARTP技术对乳酸片球菌进行诱变处理,结合抑菌能力初筛与细菌素效价、耐酸与耐胆盐能力复筛,选育得到抑菌性能与抗逆性能显著增强的诱变菌株。在此基础上,进一步测定诱变菌株的模拟胃肠消化存活率、自聚集性与细胞表面疏水性等关键益生特性与安全性评价,确保其在实际应用中的存活与定植能力。最后,通过基因组重测序分析,探讨诱变前后关键突变基因的差异,为开发用于预防和治疗腹泻的新型微生态制剂提供优质的菌种资源与理论依据。
1 材料与方法
1.1 实验菌株
乳酸片球菌NCUF214.4,实验室菌种库保藏菌株。指示菌菌株为产肠毒素大肠杆菌BNCC186736,北纳创联生物科技有限公司。溶血性实验所用阳性菌株为金黄色葡萄球菌(Staphylococcus aureus)CMCC 26003,保藏于南昌大学食品学院实验室。
1.2 材料与试剂
MRS肉汤培养基、MRS琼脂培养基,北京奥博星生物技术有限责任公司;LB肉汤培养基、LB营养琼脂培养基、哥伦比亚血琼脂平板,青岛高科技工业园海博生物技术有限公司;牛胆盐、胃蛋白酶、胰蛋白酶,上海源叶生物科技有限公司;抗生素药敏纸片,常德比克曼生物科技有限公司;其余试剂均为分析纯。
1.3 仪器与设备
ARTP-M诱变仪,无锡天木生物科学仪器有限公司;FE28型pH计,梅特勒-托利多仪器有限公司;ZDX-35BI立式压力蒸汽灭菌锅,上海申安医疗器械;FA1604精密电子天平,上海精密科学仪器有限公司;QL-901涡旋振荡器,江苏省海门市美林贝尔有限公司;UV-7504紫外分光光度计,上海精密科学仪器有限公司;SPX-80S-Ⅱ恒温培养箱,上海金苗实验仪器有限公司。
1.4 实验方法
1.4.1 ARTP诱变
8 000 r/min,4 ℃离心收集处于对数期乳酸片球菌菌液,用生理盐水洗涤并稀释至OD600nm=0.6~0.8;然后取10 μL菌液均匀涂布于无菌小铁片上,放入诱变仪中进行诱变处理,以He为载气,气流量10 L/min,功率120 W,设置ARTP诱变时间为0、20、40、60、80、100、120 s。对照组为未经ARTP处理的菌悬液。计算致死率并绘制致死率曲线,致死率按公式(1)计算:
致死率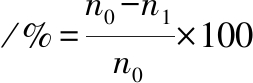
(1)
式中:n0, 未经诱变处理的菌落数,CFU/mL;n1, 诱变处理后的菌落数,CFU/mL。
1.4.2 抑菌性能初筛
将诱变后的菌悬液梯度稀释后均匀涂布于MRS固体培养基,37 ℃培养48 h,随机挑选形态饱满、颗粒较大的单菌落进行活化培养。将指示菌ETEC接种在LB肉汤培养基中,37 ℃、150 r/min摇床振荡培养24 h,随后8 000 r/min离心10 min,无菌生理盐水重悬并调整菌悬液浓度至1×10⁸ CFU/mL。
使用打孔法测定抑菌性能:取100 μL指示菌菌悬液涂布于LB固体培养基,用灭菌打孔器在培养基上打孔。每孔中加入100 μL待测菌株菌液,同时以MRS培养基作为阴性对照,4 ℃预扩散2~4 h后,37 ℃培养24 h。用游标卡尺测量并记录抑菌圈直径。选取其中抑菌效果较好的菌株进行复筛。
1.4.3 菌株复筛
1.4.3.1 细菌素效价复筛
采用打孔法测定菌株的细菌素效价,以ETEC为指示菌,利用乳酸链球菌素标准品构建效价标准曲线,测定菌株产细菌素的相对抑菌效价。用0.02 mol/L 的盐酸将乳酸链球菌素标准品稀释成106、105、104、103、102 IU/mL的乳酸链球菌素标准液。以不同浓度的乳酸链球菌素标准溶液的效价的对数值(lg)为横坐标,以抑菌圈直径为纵坐标,绘制标准曲线,根据待测样品所产生的抑菌圈直径,代入标准曲线方程计算其相对效价。
1.4.3.2 酸耐受性和胆盐耐受性复筛
参照Zhang等[13]的方法并稍作修改,将复筛菌株进行活化,以10%接种量分别转接至pH=3和牛胆盐3 g/L的MRS培养基中,并分别于0、3 h取样。样品经梯度稀释后涂布于MRS固体培养基,37 ℃培养24 h后进行活菌计数,并根据菌落数计算3 h时的存活率,计算如公式(2)所示:
存活率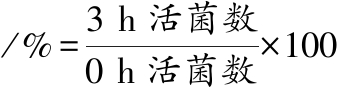
(2)
1.4.4 遗传稳定性分析
根据以上筛选结果,将筛选得到的目标菌株以2%接种量接种于MRS培养基,37 ℃培养24 h,以此作为1次传代培养,之后每隔24 h进行1次接种记为1次传代,连续传代培养10次,测定其每一代的抑菌性能,每代设置3个重复,以此评估该菌株的遗传稳定性。
1.4.5 菌株自聚集能力和细胞表面疏水性测定
参照Li等[14]的方法并稍作修改,取乳酸菌发酵液离心(8 000 r/min,15 min)并洗涤后重悬于无菌PBS中,调节菌悬液OD600nm=(0.5±0.05)。
吸取4 mL菌悬液加入试管中,室温下分别静置2、6、12、18、24 h后测定该菌悬液OD600nm值,每个菌株重复3次。自聚集率计算如公式(3)所示:
自聚集率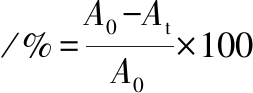
(3)
式中,A0,乳酸菌0 h的OD600nm;At,乳酸菌静置不同时间的OD600nm。
取2 mL菌悬液与等体积二甲苯涡旋混合均匀,并于室温静置1 h。取上层水相,以PBS为空白对照,测定该菌悬液OD600nm值。每个菌株重复3次。表面疏水率计算如公式(4)所示:
表面疏水率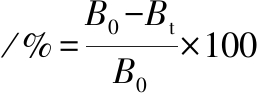
(4)
式中,B0,乳酸菌0 h的OD600nm;Bt,乳酸菌静置1 h后的OD600nm。
1.4.6 模拟胃肠道消化存活率
参照Liu等[15]的方法制备模拟胃肠液,将活化的乳酸菌按体积比1∶10接种于人工胃液中,37 ℃静置培养3 h;随后转移1 mL菌液至9 mL人工肠液中,37 ℃继续培养4 h。采用平板稀释涂布法测定0、3、7 h时的活菌数,并计算其在模拟胃肠道环境中的存活率,计算如公式(5)所示:
存活率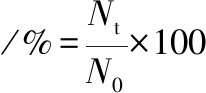
(5)
式中,N0,处理前乳酸菌的总活菌数,CFU/mL;Nt,处理不同时间乳酸菌的总活菌数,CFU/mL。
1.4.7 溶血性实验
将活化后的乳酸菌菌株划线接种于哥伦比亚血琼脂培养基上,37 ℃培养24 h,以金黄色葡萄球菌的溶血活性作为阳性对照,观察是否出现溶血现象。
1.4.8 抗生素敏感性
采用药敏纸片琼脂扩散法测定菌株对抗生素的敏感性。将菌株涂布于MRS固体培养基上,然后将红霉素、头孢噻吩、青霉素、诺氟沙星、四环素、环丙沙星、氯霉素、万古霉素、克林霉素、链霉素、氧氟沙星、庆大霉素12种药敏纸片分别贴于MRS平板表面,37 ℃培养24 h,测量各药敏片的抑菌圈直径,测量3次取平均值。根据抑菌圈直径大小将分离株的耐药性分为耐药(R)、敏感(S)或中介(I),评价标准参照美国临床与实验室标准协会(2014年)[16]进行。
1.4.9 诱变菌株NCUF214.4-A33的基因组重测序分析
采用十六烷基三甲基溴化铵法(CTAB法)提取乳酸片球菌NCUF214.4和NCUF214.4-A33的DNA,选择质量合格的样品进行测序文库构建,并以出发菌株NCUF214.4作为参考基因组进行后续分析的比对基础。对测序得到的原始数据进行质量评估后,使用Burrows-Wheeler比对器将过滤后得到的高质量数据比对到参考基因组上,利用GATK软件分析样品和参考基因组之间的基因型差异,并使用ANNOVAR软件根据参考基因组的注释信息对突变进行注释和分析。
1.5 数据处理
本试验全部设置3个重复,数据使用软件SPSS 27.0进行分析,使用单因素方差分析差异显著性(P<0.05),所有数据以“平均数±标准差”的形式表现,作图使用软件Origin 2022。
2 结果与分析
2.1 ARTP诱变
2.1.1 最佳诱变时间的确定
选取对数生长期的菌株进行ARTP诱变,如图1所示,在一定范围内,菌株致死率与处理时间呈正相关;当处理时间分别为120、140 s时,致死率相应为91.46%、96.98%。有研究表明,致死率在90%左右更有利于获得高频阳性突变[17]。因此选择120 s为本实验ARTP诱变的最佳处理时间。
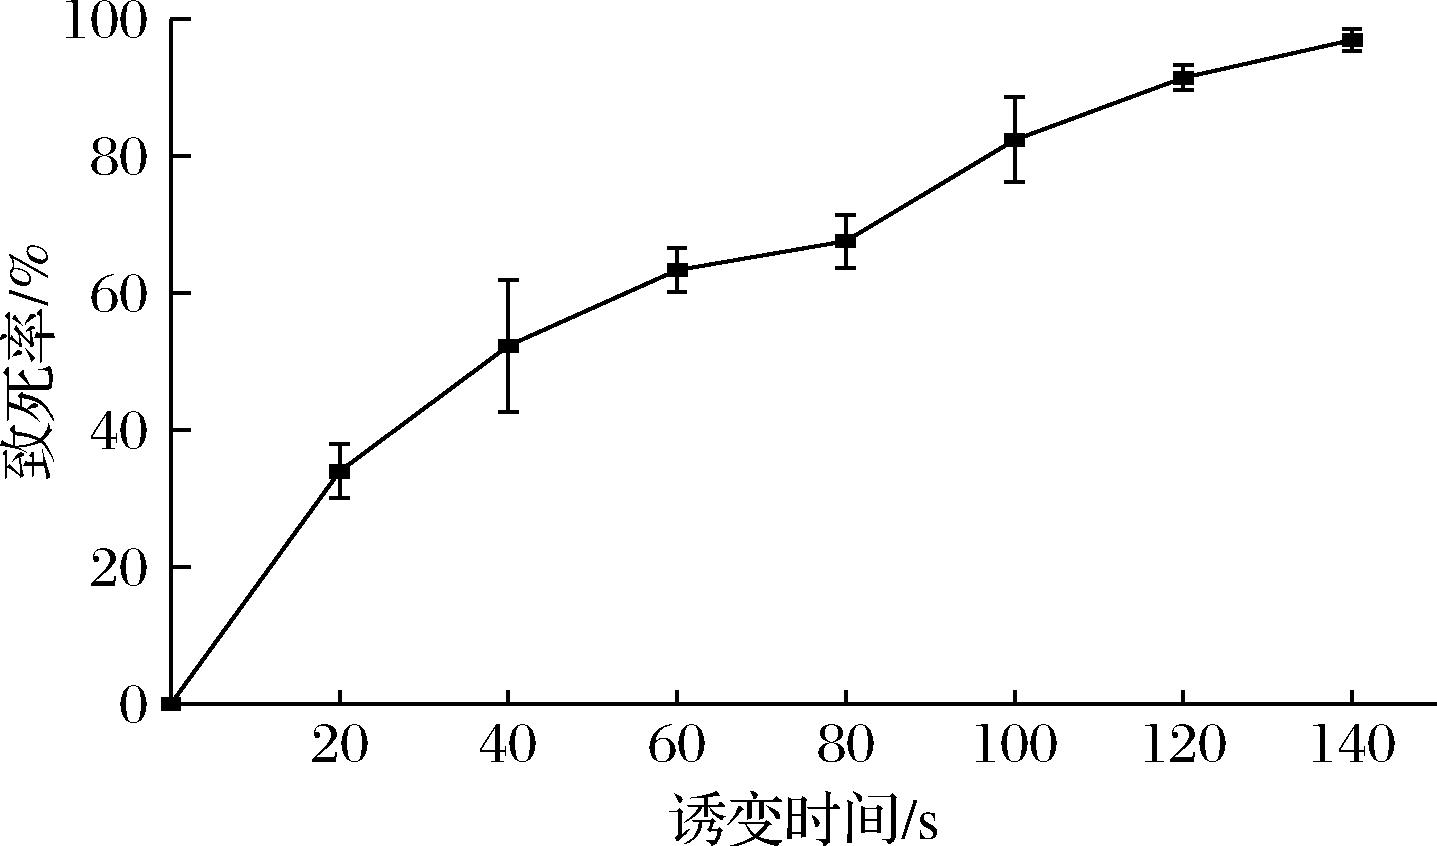
图1 乳酸片球菌NCUF214.4 ARTP致死率曲线
Fig.1 ARTP lethality curve of Pediococcus acidilactici NCUF214.4
2.1.2 抑菌性能初筛
随机挑选50株长势良好的诱变单菌落进行编号并测定其抑菌活性,结果如表1所示。
表1 诱变菌株的抑菌活性
Table 1 Antibacterial activity of mutagenized strains
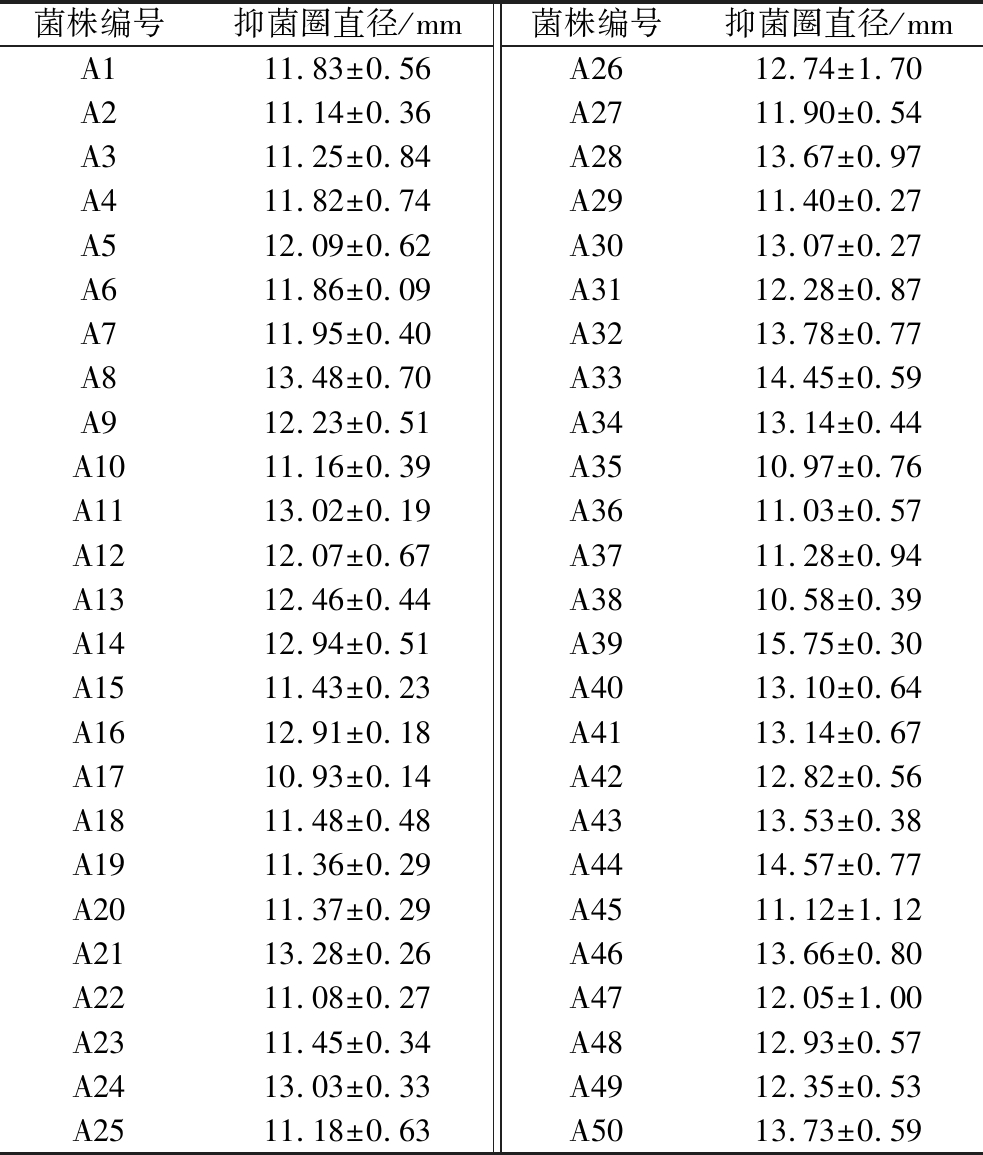
菌株编号抑菌圈直径/mm菌株编号抑菌圈直径/mmA111.83±0.56A2612.74±1.70A211.14±0.36A2711.90±0.54A311.25±0.84A2813.67±0.97A411.82±0.74A2911.40±0.27A512.09±0.62A3013.07±0.27A611.86±0.09A3112.28±0.87A711.95±0.40A3213.78±0.77A813.48±0.70A3314.45±0.59A912.23±0.51A3413.14±0.44A1011.16±0.39A3510.97±0.76A1113.02±0.19A3611.03±0.57A1212.07±0.67A3711.28±0.94A1312.46±0.44A3810.58±0.39A1412.94±0.51A3915.75±0.30A1511.43±0.23A4013.10±0.64A1612.91±0.18A4113.14±0.67A1710.93±0.14A4212.82±0.56A1811.48±0.48A4313.53±0.38A1911.36±0.29A4414.57±0.77A2011.37±0.29A4511.12±1.12A2113.28±0.26A4613.66±0.80A2211.08±0.27A4712.05±1.00A2311.45±0.34A4812.93±0.57A2413.03±0.33A4912.35±0.53A2511.18±0.63A5013.73±0.59
以抑菌活性高于出发菌株为阳性判定标准,共得到20株乳酸菌阳性突变菌株,其中,诱变菌株NCUF214.4-A39的抑菌活性最高,其抑菌圈直径为15.75 mm,较出发菌株提高了22.85%,和前人筛选的乳酸链球菌R-43(8.9 mm)[18]与嗜酸乳杆菌LMEM8(12.50 mm)[19]相比,具有更强的抑菌能力。NCUF214.4-A44、NCUF214.4-A33次之,分别提升了13.65%、12.71%。选取抑菌活性最高的9株诱变菌株,即编号为NCUF214.4-A8、NCUF214.4-A28、NCUF214.4-A32、NCUF214.4-A33、NCUF214.4-A39、NCUF214.4-A43、NCUF214.4-A44、NCUF214.4-A46、NCUF214.4-A50这9株具有显著增效的优良突变株进入下一步复筛。
2.1.3 细菌素效价复筛
细菌素是细菌经核糖体途径合成、具有抑菌活性的蛋白质或多肽类物质[20]。为进一步评价诱变菌株的抑菌性能,本研究以出发菌株NCUF214.4为对照,测定了9株复筛菌株的细菌素效价。图2-a为细菌素效价的标准曲线,由图2-b可知,9株复筛菌株的效价较出发菌株均有不同程度提升。其中诱变菌株NCUF214.4-A39的效价显著提升了101.54%,NCUF214.4-A33的效价提升了91.67%,其次是NCUF214.4-A44与NCUF214.4-A32。
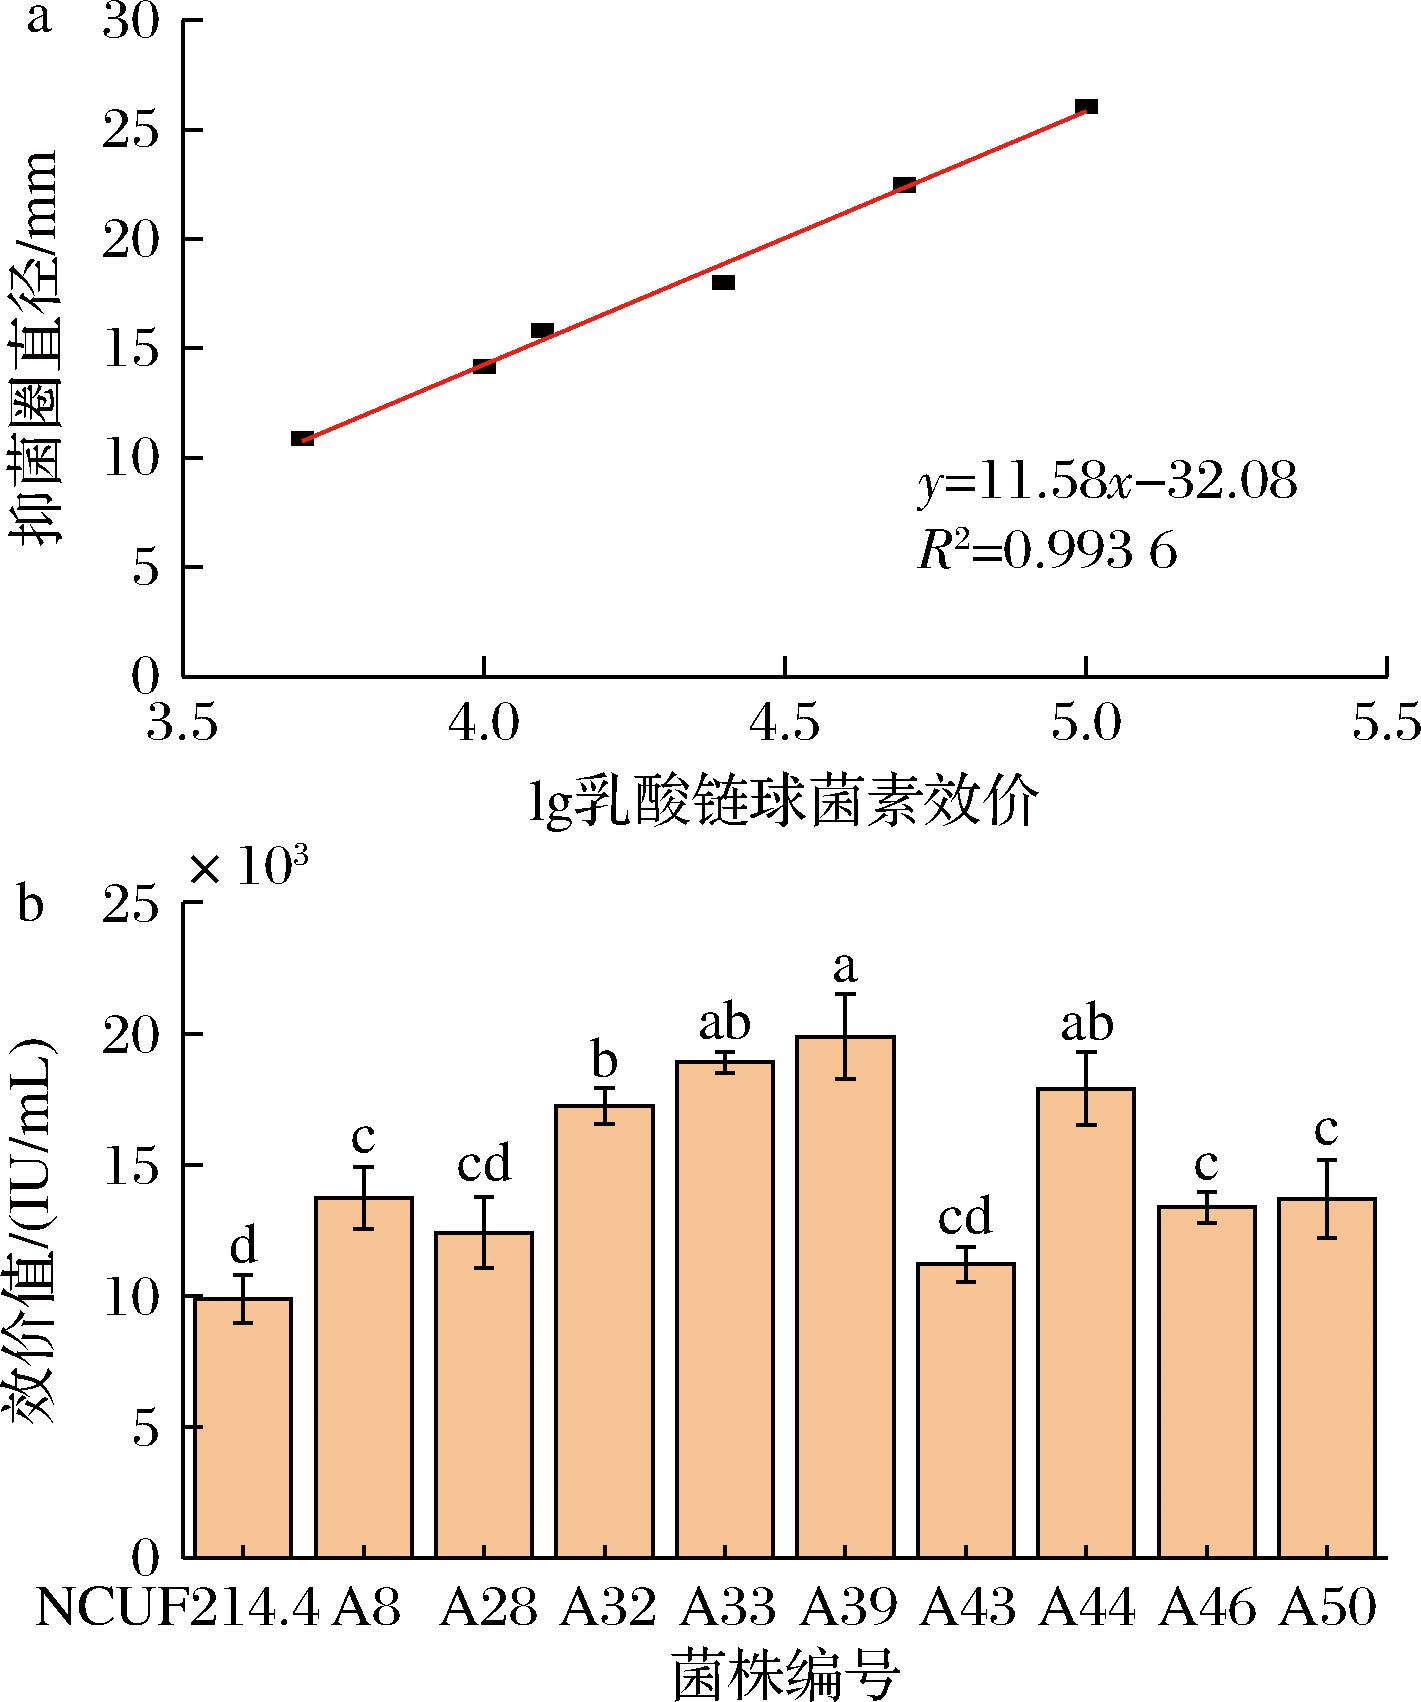
a-细菌素效价标准曲线;b-原始菌株NCUF214.4与9株诱变菌株效价
图2 诱变菌株的细菌素效价复筛
Fig.2 Rescreening of bacteriocin potency of mutagenized strains
注:不同字母代表存在显著差异(P<0.05)(下同)。
2.1.4 酸耐受性和胆盐耐受性复筛
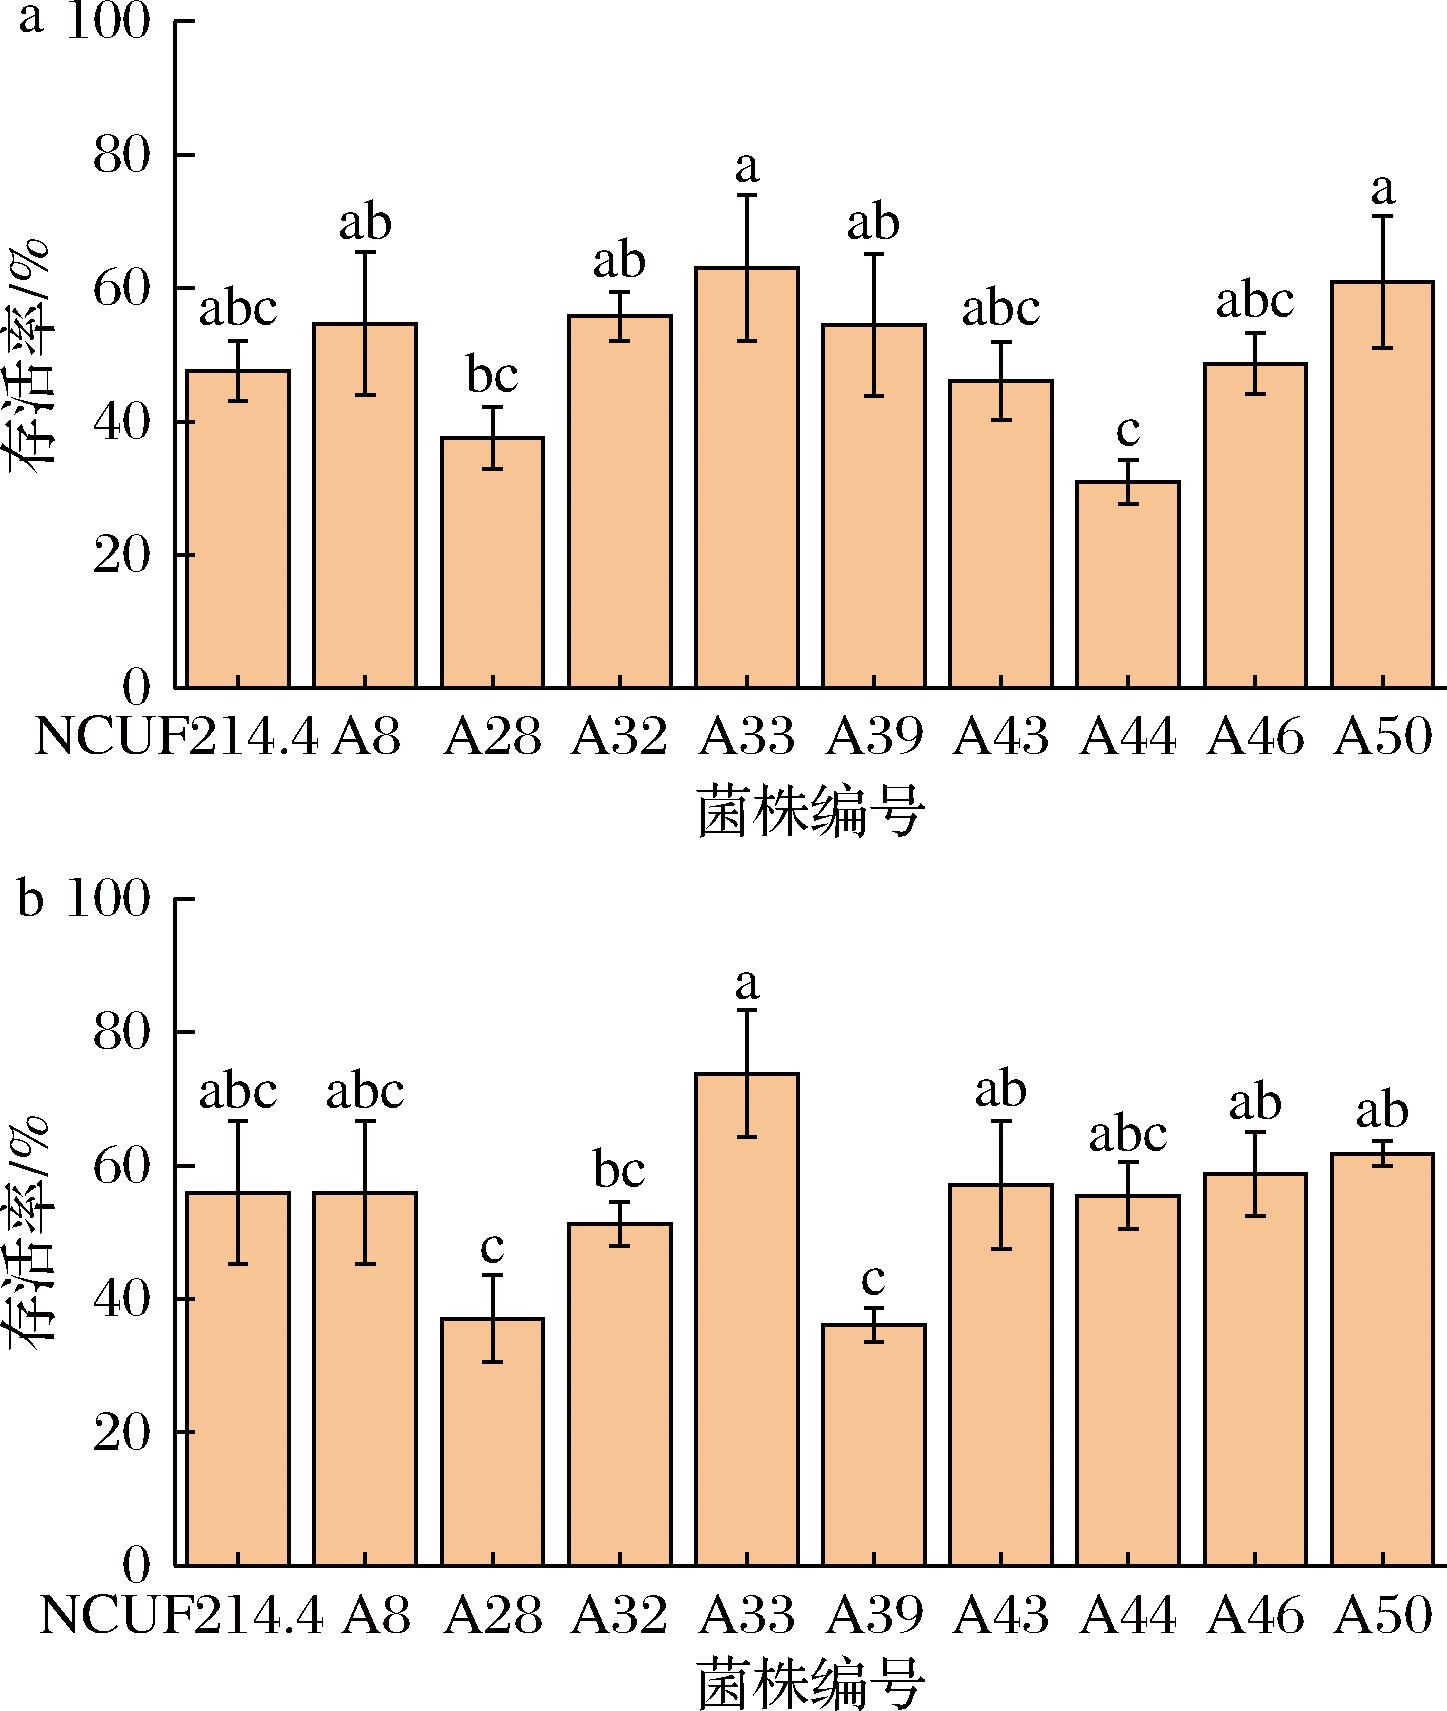
乳酸菌在肠道成功定植的前提是其具备对胃酸(pH值范围为2.5~3.5)和3 g/L胆盐的耐受能力。如图3-a所示,pH=3处理3 h后,有6株诱变菌株存活率均高于出发菌株(47.6%),其中NCUF214.4-A33与NCUF214.4-A50的存活率分别为62.99%、60.59%;在3 g/L胆盐条件下(图3-b),5株诱变菌株表现出更优的耐受性,其中NCUF214.4-A33的存活率最高(73.80%)。结合各突变菌株的抑菌性能以及耐酸耐胆盐性能,最终选定NCUF214.4-A33作为后续研究的目的菌株。
a-pH 3条件下存活率;b-3 g/L胆盐条件下存活率
图3 诱变菌株的酸耐受性和胆盐耐受性复筛
Fig.3 Rescreening of acid tolerance and bile salt tolerance of mutagenized strains
2.1.5 遗传稳定性分析
为验证诱变菌株抑菌活性的遗传稳定性,将诱变菌株连续接种培养10代,测定其抑制ETEC能力。如图4所示,菌株平均抑菌直径为14.69 mm,且组间无显著性差异。表明NCUF214.4-A33的抑菌性能保持相对稳定,具有良好的遗传稳定性。
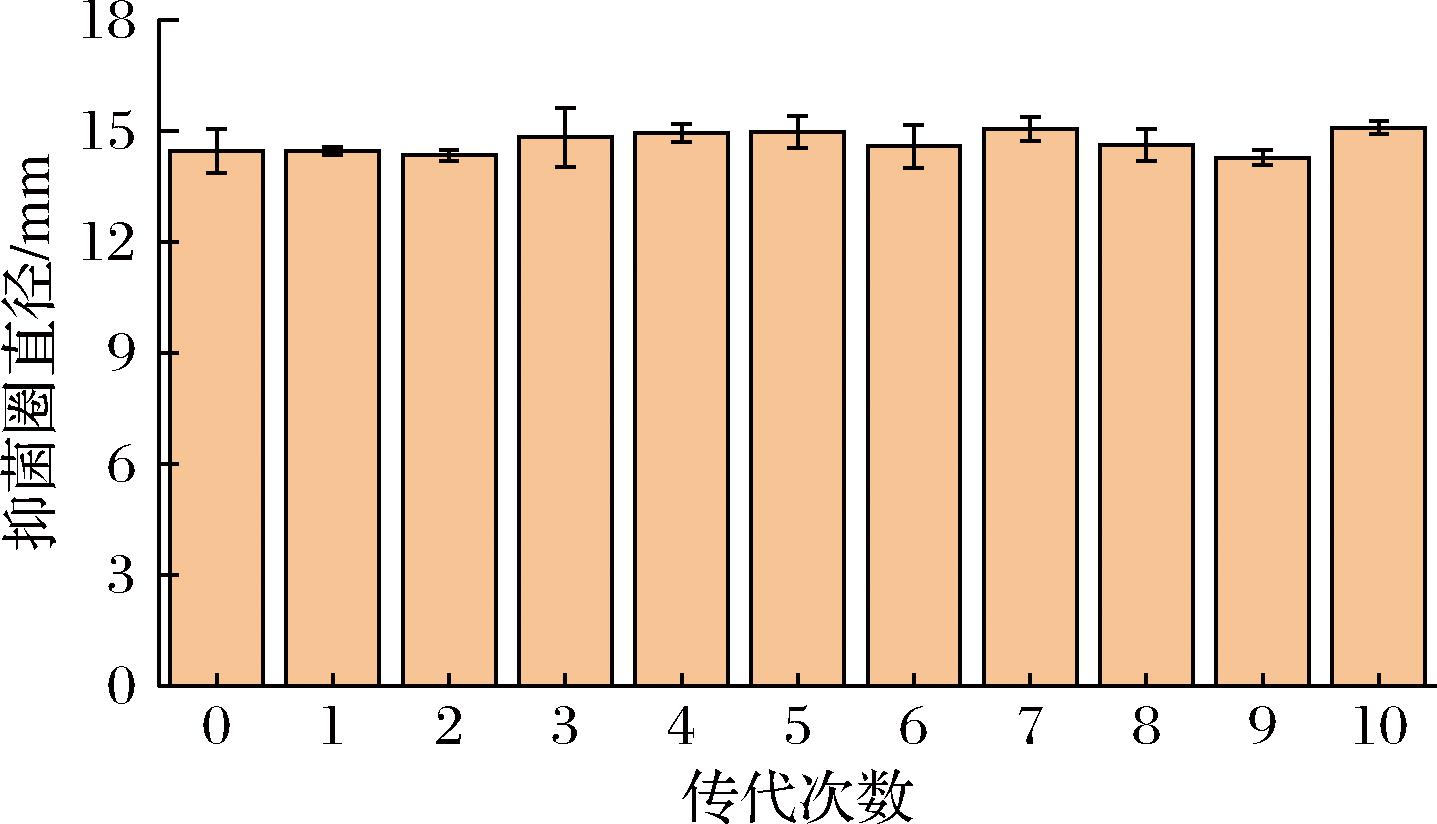
图4 诱变菌株NCUF214.4-A33的遗传稳定性
Fig.4 Genetic stability of the mutagenized strain NCUF214.4-A33
2.2 菌株自聚集能力和细胞表面疏水性测定
乳酸菌的自聚集能力与细胞表面疏水性是评价其肠道定植潜力的重要指标。如图5所示,随着培养时间延长,出发菌株NCUF214.4与诱变菌株NCUF214.4-A33的自聚集率均呈上升趋势。从12 h开始,A33表现出更强的自聚集能力,至24 h时其自聚集率最高,为77.83%,显著高于出发菌株(P<0.05)。同时,出发菌株与诱变菌株均表现出较高的细胞表面疏水性,分别为56.84%、58.19%,且两者之间无显著性差异(P>0.05)。已有研究认为,自聚集能力是益生菌黏附上皮和黏液层的前提之一,也是形成生物屏障、阻止病原菌黏附的重要基础[21]。结果表明,菌株NCUF214.4-A33中后期的自聚集能力显著增强(P<0.05),说明ARTP诱变有助于提高菌株的自聚集能力,这有利于其在复杂肠道环境中形成生物膜,进而增强定植稳固性,与该诱变菌株抑菌性能的提高存在一定正相关关系。
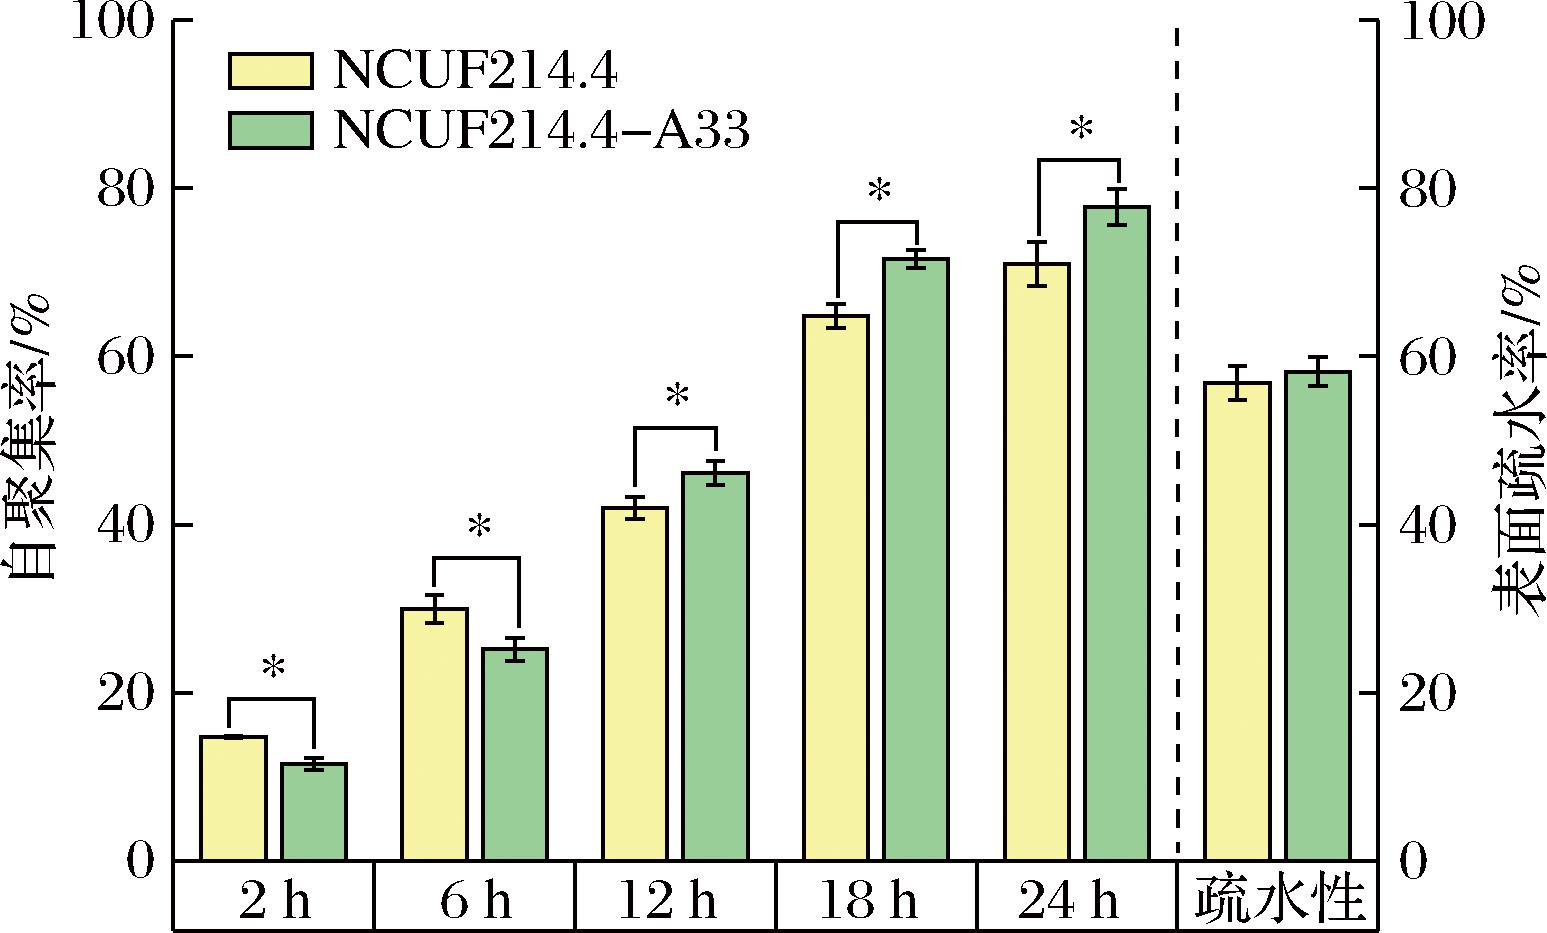
图5 菌株的自聚集性和细胞表面疏水性
Fig.5 Auto-aggregation and cell surface hydrophobicity of the strains
注:*表示两组间存在显著差异(P<0.05)(下同)。
2.3 模拟胃肠道消化存活率
通过对比出发菌株NCUF214.4与诱变菌株NCUF214.4-A33在模拟胃肠液中的活菌数变化,评价其抗逆性能。如图6所示,经模拟胃液(3 h)及肠液(4 h)连续处理后,两菌株活菌数均呈下降趋势。经模拟胃液消化后,诱变菌株NCUF214.4-A33的活菌数为5.53×10⁷ CFU/mL,存活率为60.58%,均高于出发菌株。模拟肠液处理后,虽然两菌株活菌数进一步降低,但NCUF214.4-A33的活菌数为3.07×107 CFU/mL,显著高于出发菌株的2.09×107 CFU/mL(P<0.05),存活率为55.57%。模拟胃肠道消化过程本质上是对菌株在胃酸、消化酶及小肠胆盐等多重胁迫条件下综合存活能力的评价,诱变菌株NCUF214.4-A33在模拟胃液和肠液的存活率始终高于出发菌株,这一结果与2.1.4节中其耐酸耐胆盐性能增强的结果相一致。说明ARTP诱变在一定程度上提高了乳酸片球菌对低pH环境和消化液胁迫的综合耐受能力,从而有利于其顺利通过胃肠道,并为后续在肠道中发挥益生作用提供保障。
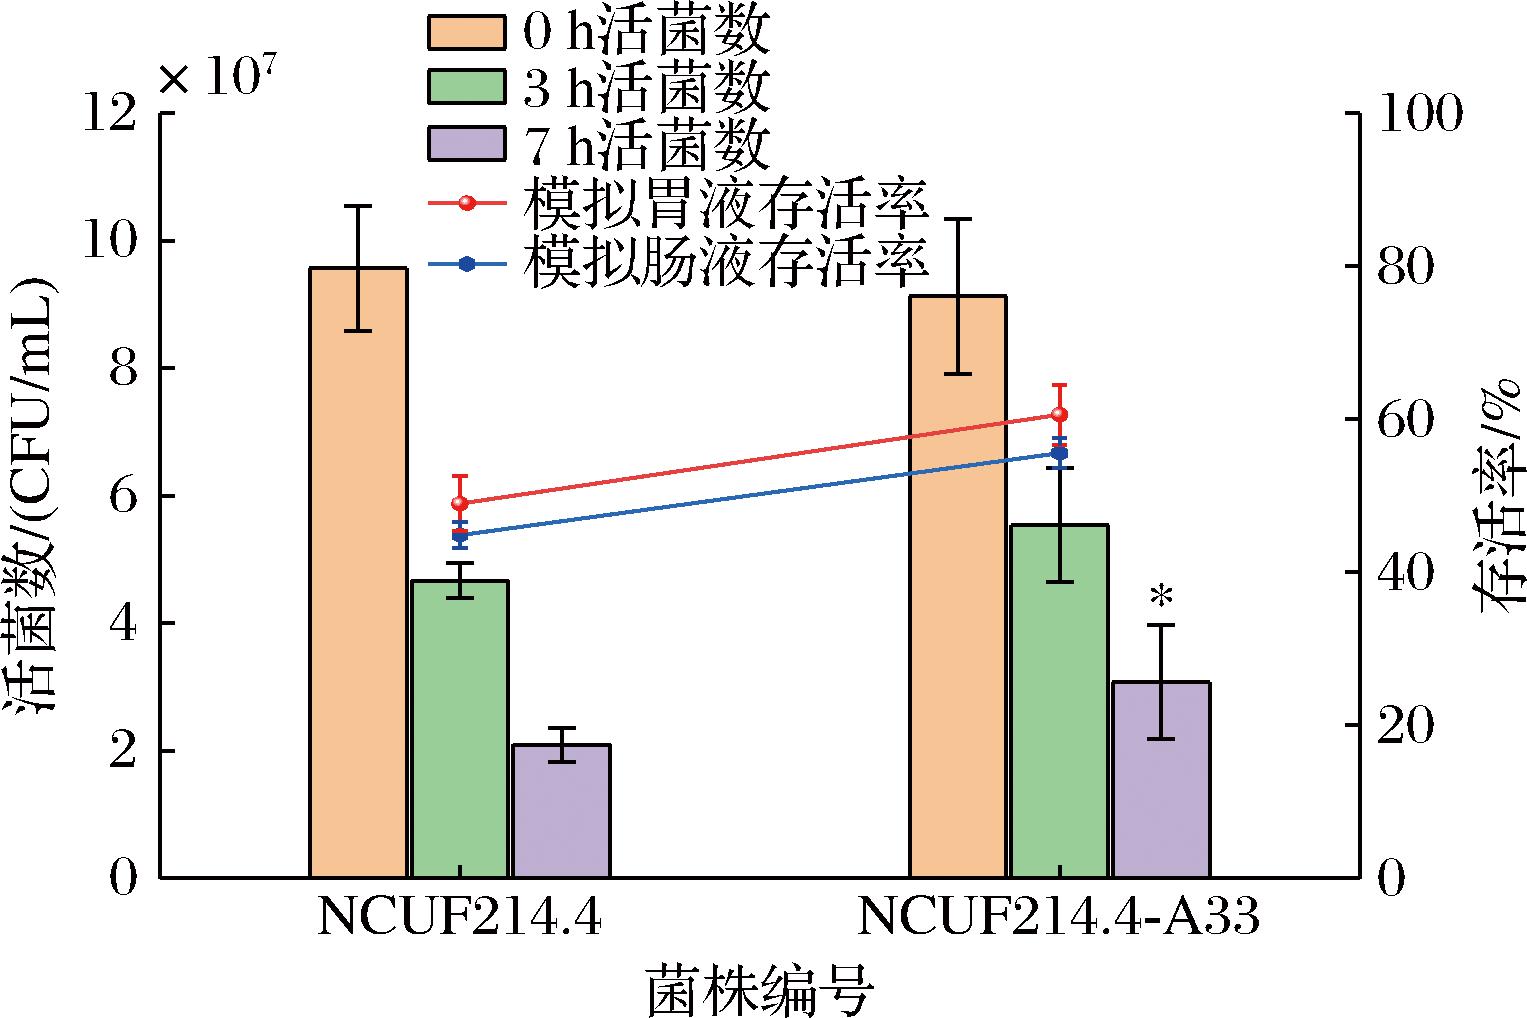
图6 菌株的模拟胃肠道消化存活率
Fig.6 Survival rates of the strains under simulated gastrointestinal digestion
2.4 溶血性评价
如图7所示,阳性对照菌株金黄色葡萄球菌菌落周围红细胞完全破裂,形成界限分明、完全透明的溶血环,为β-溶血。而2株乳酸片球菌周围均无溶血环出现,为γ-溶血,表明这2株乳酸菌均不具有溶血性。
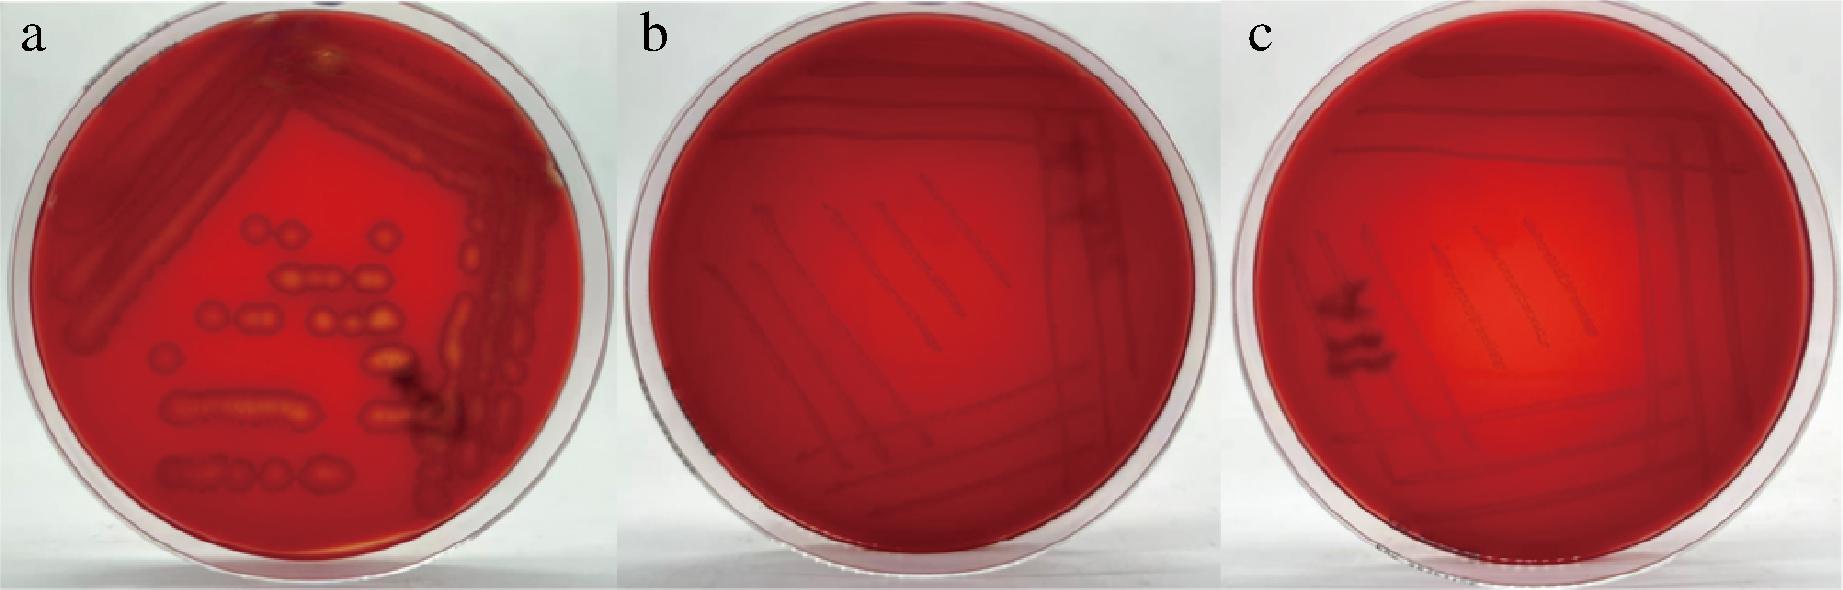
a-金黄色葡萄球菌;b-出发菌株NCUF214.4;c-诱变菌株NCUF214.4-A33
图7 菌株溶血性测定结果
Fig.7 Hemolysis assay results of the strains
2.5 抗生素敏感性分析
如表2所示,2株菌均对诺氟沙星、环丙沙星、链霉素和氧氟沙星耐药,对四环素中度敏感,而对红霉素、头孢噻吩、青霉素、氯霉素和克林霉素敏感。表明2株乳酸片球菌受不同种类的抗生素抑制而不具有潜在致病风险,可判定为安全可用菌株。
表2 菌株对12种抗生素的耐药性
Table 2 Resistance of strains to 12 antibiotics
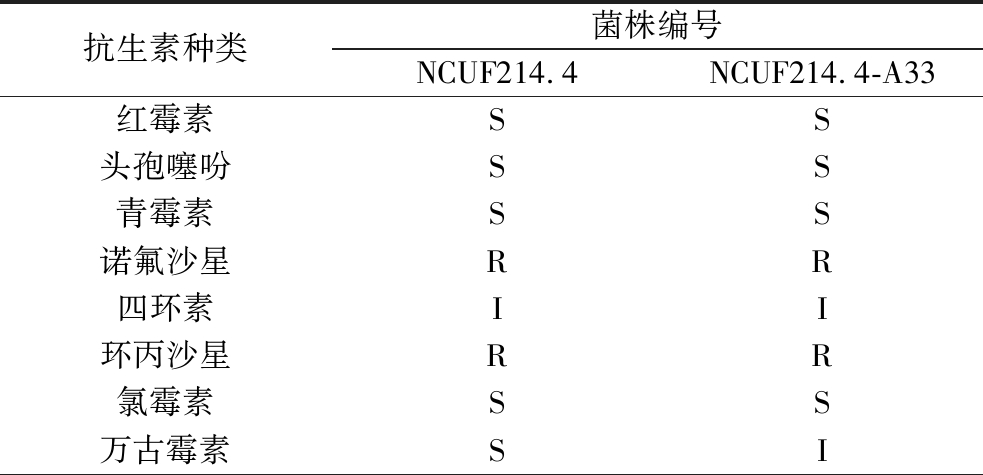
抗生素种类菌株编号NCUF214.4NCUF214.4-A33红霉素SS头孢噻吩SS青霉素SS诺氟沙星RR四环素II环丙沙星RR氯霉素SS万古霉素SI
续表2
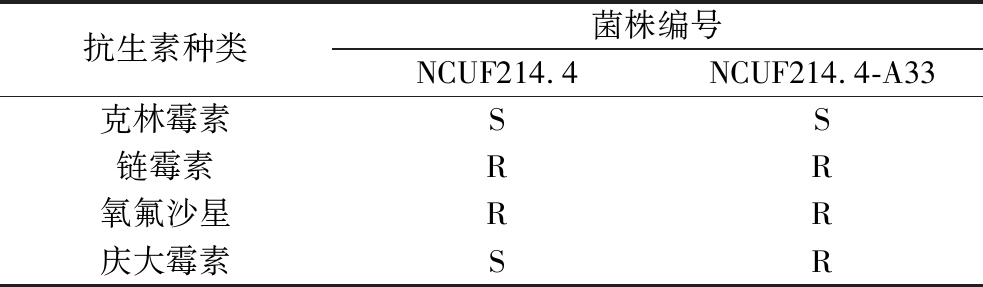
注:“S”表示敏感,“I”表示中度敏感,“R”表示耐药。
抗生素种类菌株编号NCUF214.4NCUF214.4-A33克林霉素SS链霉素RR氧氟沙星RR庆大霉素SR
2.6 基于基因组重测序分析诱变菌株抑菌性能提升的机制
全基因组重测序技术是在已知参考基因组序列的基础上,对目标个体基因组进行高通量测序,从而通过比较分析全面解析基因组水平的变异信息。单核苷酸多态性(single nucleotide polymorphism, SNP)是指在基因组水平上由单个核苷酸的变异所引起的DNA序列多态性,插入缺失标记(insertion-deletion, InDel)是指基因组中相对较短的序列插入或缺失,虽发生率低于SNP,但更易引起阅读框移位或调控元件改变,对基因功能的影响往往更为显著[22]。为明确诱变菌株抑菌性能提升的遗传基础,本研究以出发菌株NCUF214.4的基因组作为参考,对诱变菌株NCUF214.4-A33的重测序数据进行比对分析。结果显示2株菌的SNP和InDel变异情况存在明显差异。
SNP分析表明,诱变菌株NCUF214.4-A33相对于出发菌株共检测到100个SNP位点,其中杂合SNP 100个、纯合SNP 0个;转换74个,颠换26个,转换/颠换比值约2.85,说明该菌株中碱基替换以转换突变为主。InDel分析显示,诱变菌株NCUF214.4-A33共检测到6个InDel位点,其中插入位点4个、缺失位点2个,且均为杂合状态。综上所述,NCUF214.4-A33的抑菌性能提升涉及不同的基因变异,包括SNP数量的增加和InDel的新发突变。
对诱变菌株NCUF214.4-A33的差异基因与功能注释结果进行整合分析后发现,其抑菌性能提升可能与多类基因变异共同作用有关。结合重测序结果及功能注释信息,进一步筛选得到三类与抑菌性能提升关系较为密切的候选变异基因(表3)。其中,编号为gene36的基因被注释为含LysM肽聚糖结合结构域蛋白。有研究表明,LysM结构域能够识别并结合细菌细胞壁中的肽聚糖,在细胞壁代谢、菌体表面结构维持方面发挥重要作用[23]。因此,gene36的变异可能通过影响细胞壁稳定性和表面结构特征,提高菌株在复杂环境中的适应性及竞争定植能力,进而间接增强其抑菌性能。lacL基因主要编码β-半乳糖苷酶,lacL基因的变异可能提高了菌株对碳源的降解效率,通过加强糖酵解途径促进了乳酸及乙酸等有机酸的快速积累,不仅直接通过降低环境pH值抑制病原菌[24],还为其他抑菌物质的合成提供了底物[25]。此外,gene2005被注释为ISL3家族转座酶,其插入序列和转座相关元件是细菌基因组可塑性的重要驱动因素,能够通过插入、重排及影响邻近基因表达改变菌株表型[26]。Sentausa等[27]的研究指出,ISL3插入序列元件可通过改变多个表面大分子(如脂多糖的结构),以及调控耐药相关蛋白质水平和毒力因子的表达,影响细菌对环境的适应能力。因此,NCUF214.4-A33抑菌性能的增强并非由单一基因突变所致,可能与细胞壁或菌体表面结构调节、糖代谢能力变化及移动遗传元件相关区域重塑等多种因素共同作用有关。
表3 与抑菌性能提升相关的候选变异基因
Table 3 Candidate variant genes associated with enhanced antibacterial activity
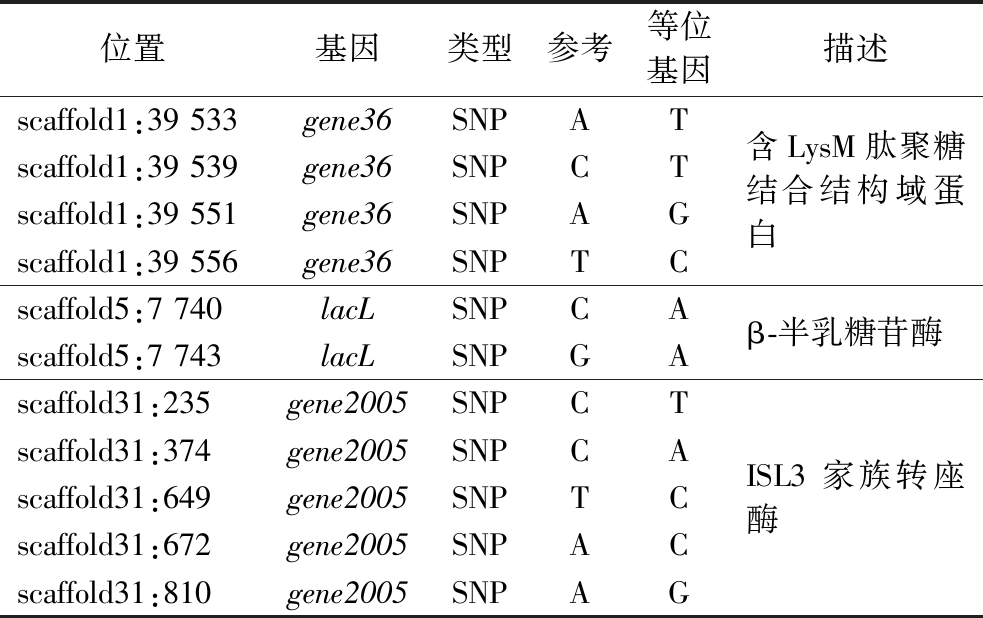
位置基因类型参考等位基因描述scaffold1:39 533gene36SNPATscaffold1:39 539gene36SNPCTscaffold1:39 551gene36SNPAGscaffold1:39 556gene36SNPTC含LysM肽聚糖结合结构域蛋白scaffold5:7 740lacLSNPCAscaffold5:7 743lacLSNPGAβ-半乳糖苷酶scaffold31:235gene2005SNPCTscaffold31:374gene2005SNPCAscaffold31:649gene2005SNPTCscaffold31:672gene2005SNPACscaffold31:810gene2005SNPAGISL3 家族转座酶
3 结论
本研究通过ARTP技术,成功筛选获得一株抑菌性能显著增强的乳酸片球菌突变株NCUF214.4-A33。结果表明,诱变菌株的抑菌圈直径较出发菌株扩大12.71%,细菌素效价提升了91.67%。且该诱变菌株在pH值为3与3 g/L胆盐条件下具有良好抗逆性,同时在模拟胃肠道环境下表现出优异的耐受能力与自聚集性,结合其良好的抗生素敏感性与生物安全性,展现出卓越的益生潜力。基因组重测序分析进一步揭示,关键基因(如gene36、lacL和gene2005)的突变可能是其抑菌性能提升的遗传基础。本研究不仅为防治细菌性腹泻提供了理想的候选菌株,也为乳酸菌的定向育种及功能改良提供了技术范例与理论支撑。
[1] GBD Diarrhoeal Diseases Collaborators. Estimates of global, regional, and national morbidity, mortality, and aetiologies of diarrhoeal diseases: A systematic analysis for the Global Burden of Disease Study 2015[J]. The Lancet. Infectious Diseases, 2017, 17(9):909-948.
[2] Von Mentzer A, Svennerholm A M.Colonization factors of human and animal-specific enterotoxigenic Escherichia coli (ETEC)[J].Trends in Microbiology, 2024, 32(5):448-464.
[3] Akram F, Imtiaz M, Haq I U.Emergent crisis of antibiotic resistance:A silent pandemic threat to 21 st century[J].Microbial Pathogenesis, 2023, 174:105923.
[4] Sanders M E, Merenstein D J, Reid G, et al.Probiotics and prebiotics in intestinal health and disease:From biology to the clinic[J].Nature Reviews Gastroenterology &Hepatology, 2019, 16(10):605-616.
[5] Porto M C W, Kuniyoshi T M, Azevedo P O S, et al.Pediococcus spp.:An important genus of lactic acid bacteria and pediocin producers[J].Biotechnology Advances, 2017, 35(3):361-374.
[6] Brown R, Zheng R, Jacobi S K.PSV-21 Pediococcus acidilactici survives an in vitro simulated digestion[J].Journal of Animal Science, 2024, 102(Supplement_2):316-317.
[7] Guo X, Bai X, Zheng Z, et al.Optimization of culture conditions for bacteriocin production by Pediococcus acidilactici CCFM18 and characterization of its biological properties[J].Fermentation, 2025, 11(8):470.
[8] Zhang Q, Miao R, Feng R, et al.Application of atmospheric and room-temperature plasma (ARTP) to microbial breeding.[J].Current Issues in Molecular Biology, 2023, 45(8):6466-6484.
[9] Ottenheim C, Nawrath M, Wu J C.Microbial mutagenesis by atmospheric and room-temperature plasma (ARTP):The latest development[J].Bioresources and Bioprocessing, 2018, 5(1):12.
[10] Jiang Y, Shang Y P, Li H, et al.Enhancing transglutaminase production of Streptomyces mobaraensis by iterative mutagenesis breeding with atmospheric and room-temperature plasma (ARTP)[J].Bioresources and Bioprocessing, 2017, 4(1):37.
[11] Yuan M, Li Z, Zhou Q, et al.Enhancement of digestive enzyme activity in Enterococcus faecalis using ARTP mutagenesis[J].Microorganisms, 2024, 12(12):2425.
[12] Songnaka N, Lertcanawanichakul M, Hutapea A M, et al.Atmospheric and room temperature plasma (ARTP) mutagenesis improved the anti-MRSA activity of Brevibacillus sp.SPR20[J].International Journal of Molecular Sciences, 2023, 24(15):12016.
[13] Zhang Q, Wang M, Ma X, et al.In vitro investigation on lactic acid bacteria isolated from yak faeces for potential probiotics[J].Frontiers in Cellular and Infection Microbiology, 2022, 12:984537.
[14] Li H, Leng C, Chen N, et al.Lactic acid bacteria reduce bacterial diarrhea in rabbits via enhancing immune function and restoring intestinal microbiota homeostasis[J].BMC Veterinary Research, 2024, 20(1):151.
[15] Liu Z, Xu C, Tian R, et al.Screening beneficial bacteriostatic lactic acid bacteria in the intestine and studies of bacteriostatic substances[J].Journal of Zhejiang University-Science B, 2021, 22(7):533-547.
[16] Schuetz A N, Ferrell A, Hindler J A, et al.Overview of changes in the clinical and laboratory standards institute performance standards for antimicrobial susceptibility testing:M100 32nd and 33rd editions[J].Journal of Clinical Microbiology, 2025, 63(9):e01623-23.
[17] 刘子龙, 崔皓然, 潘韵, 等.室温常压等离子体技术在菌株耐受性改造中的应用与研究进展[J].化工进展, 2026, 45(3):1721-1732.Liu Z L, Cui H R, Pan Y, et al.Applications and research progress of atmospheric and room temperature plasma mutagenesis in strain tolerance improvement[J].Chemical Industry and Engineering Progress, 2026, 45(3):1721-1732.
[18] Pato U, Yusmarini Y, Fitriani S, et al.Antimicrobial activity of lactic acid bacteria strains isolated from dadih against Escherichia coli[J].IOP Conference Series:Earth and Environmental Science, 2021, 709(1):012019.
[19] Halder D, Mandal M, Chatterjee S, et al.Indigenous probiotic Lactobacillus isolates presenting antibiotic like activity against human pathogenic bacteria[J].Biomedicines, 2017, 5(2):31.
[20] Soltani S, Hammami R, Cotter P D, et al.Bacteriocins as a new generation of antimicrobials:Toxicity aspects and regulations[J].FEMS Microbiology Reviews, 2021, 45(1):fuaa039.
[21] Krausova G, Hyrslova I, Hynstova I. In vitro evaluation of adhesion capacity, hydrophobicity, and auto-aggregation of newly isolated potential probiotic strains[J]. Fermentation, 2019, 5(4):100.
[22] Pagel K A, Antaki D, Lian A J, et al. Pathogenicity and functional impact of non-frameshifting insertion/deletion variation in the human genome[J]. PLoS Computational Biology, 2019, 15(6):1-21.
[23] Visweswaran G R R, Leenhouts K, Van Roosmalen M, et al.Exploiting the peptidoglycan-binding motif, LysM, for medical and industrial applications[J].Applied Microbiology and Biotechnology, 2014, 98(10):4331-4345.
[24] 孙懿琳, 方伟, 田辉, 等.保加利亚乳杆菌产酸关键酶的研究[J].食品工业科技, 2013, 34(10):187-191.Sun Y L, Fang W, Tian H, et al.Study on key enzymes involved in producing lactic acid of Lactobacillus delbrueckii subsp. bulgaricus[J].Science and Technology of Food Industry,2013,34(10):187-191.
[25] Saqib S, Akram A, Halim S A, et al.Sources of β-galactosidase and its applications in food industry[J].3 Biotech, 2017, 7(1):79.
[26] Siguier P, Gourbeyre E, Chandler M.Bacterial insertion sequences:their genomic impact and diversity[J].FEMS Microbiology Reviews, 2014, 38(5):865-891.
[27] Sentausa E, Basso P, Berry A, et al.Insertion sequences drive the emergence of a highly adapted human pathogen[J].Microbial Genomics, 2020, 6(9):mgen000265.