食药同源理念不仅构成了中国传统医学的根源,其在现代功能性食品与精准营养学领域的科学内涵也已被广泛揭示。食药同源植物所富含的次生代谢物——多酚类化合物(黄酮类、酚酸类及单宁等)因在抗氧化、抗炎及维持免疫代谢稳态方面表现出的显著生物学活性,成为当前研究的热点[1]。尽管多酚在体外和细胞水平展现出显著活性,但在小肠内的直接吸收率极低,90%~95%以原形或难溶态进入结肠[2],并由结肠中菌群介导的生物转化进一步发酵代谢。所形成的微生物衍生代谢产物可被吸收进入循环系统,作用于远端靶组织与细胞,促进多酚发挥系统性生理效应;而未被利用的残留或终末代谢物则通过肾脏等途径被排泄出体外。这一现象说明,多酚的生物学效应并不单纯取决于其母体化学结构,而在很大程度上依赖于结肠区域高度多样化且功能活跃的定植微生物群落。作为一个具有高度整合代谢功能的“类器官”系统,肠道菌群与多酚之间构建了复杂而精细的双向调控网络[3]:微生物介导的生物转化不仅决定了多酚的结构修饰、代谢谱及其生物可利用性;同时,多酚及其代谢产物通过选择性调节微生物群落组成与代谢活性,持续重塑宿主的肠道微生态稳态[4]。
肠道菌群编码和转录的酶可以促进多酚的降解、消化和吸收,包括脱糖苷化、芳环裂解以及去羟基化等关键反应,能促使原形多酚转化为结构更简单、极性适中且更易跨越肠上皮屏障的小分子代谢物[5]。相较于母体化合物,这些微生物衍生代谢物通常表现出更高的生物可利用性、更强的细胞靶向能力及生物活性,被认为是多酚介导系统性药理效应的重要物质基础[6]。与此同时,多酚及其微生物代谢产物对肠道菌群结构与功能亦具有显著的反向调控作用。多酚可通过选择性促进有益菌群的生长与代谢活性,表现出典型的类益生元效应[7],并通过破坏致病菌细胞壁结构、干扰能量代谢或抑制群体感应信号通路,从而达到限制潜在有害菌的过度扩增效果[8]。上述双向互作进一步凸显了“多酚-肠道菌群轴”在维持肠道微生态稳态及宿主健康中的核心调控作用。
这种基于多酚与肠道菌群的双向调控机制,正逐渐成为阐释食药同源植物预防慢性疾病作用机制的关键理论基础。多酚驱动的菌群结构重塑与功能演替不仅有助于强化肠黏膜屏障完整性,还通过调控短链脂肪酸(short chain fatty acids, SCFAs)等关键微生物代谢产物的生成,进一步介入宿主的系统性炎症反应网络与能量代谢稳态调节。从分子、代谢及生态层面系统解析食药同源植物多酚与肠道菌群的互作机制,对于指导新型功能性食品的精准设计以及深化传统中药药效物质基础与作用机理的现代诠释,均具有重要的理论意义与转化潜力。
近年来关于多酚与肠道菌群相互作用的研究不断增加,但现有研究多侧重于单一多酚的体外转化或菌群组成变化的相关性分析,对于食药同源植物来源的多酚在肠道微生态环境中的代谢网络及其对宿主健康的整体调控机制仍缺乏系统整合。因此,如图1所示,本文以食药同源植物中代表性多酚为研究对象,总结其在肠道菌群影响下的关键生物转化过程及其对肠道微生态和宿主代谢调控的最新研究进展,从“多酚生物转化-菌群结构重塑-宿主功能调控”的视角解析其在肠-肝轴、肠-脑轴及肠-心血管轴中的潜在作用机制,并构建“多酚-菌群-宿主”互作的整体框架。本文主要聚焦于食药同源植物来源的多酚及其肠道菌群介导的生物转化过程,以阐明其调控肠道微生态及促进宿主健康的作用机制提供理论参考。
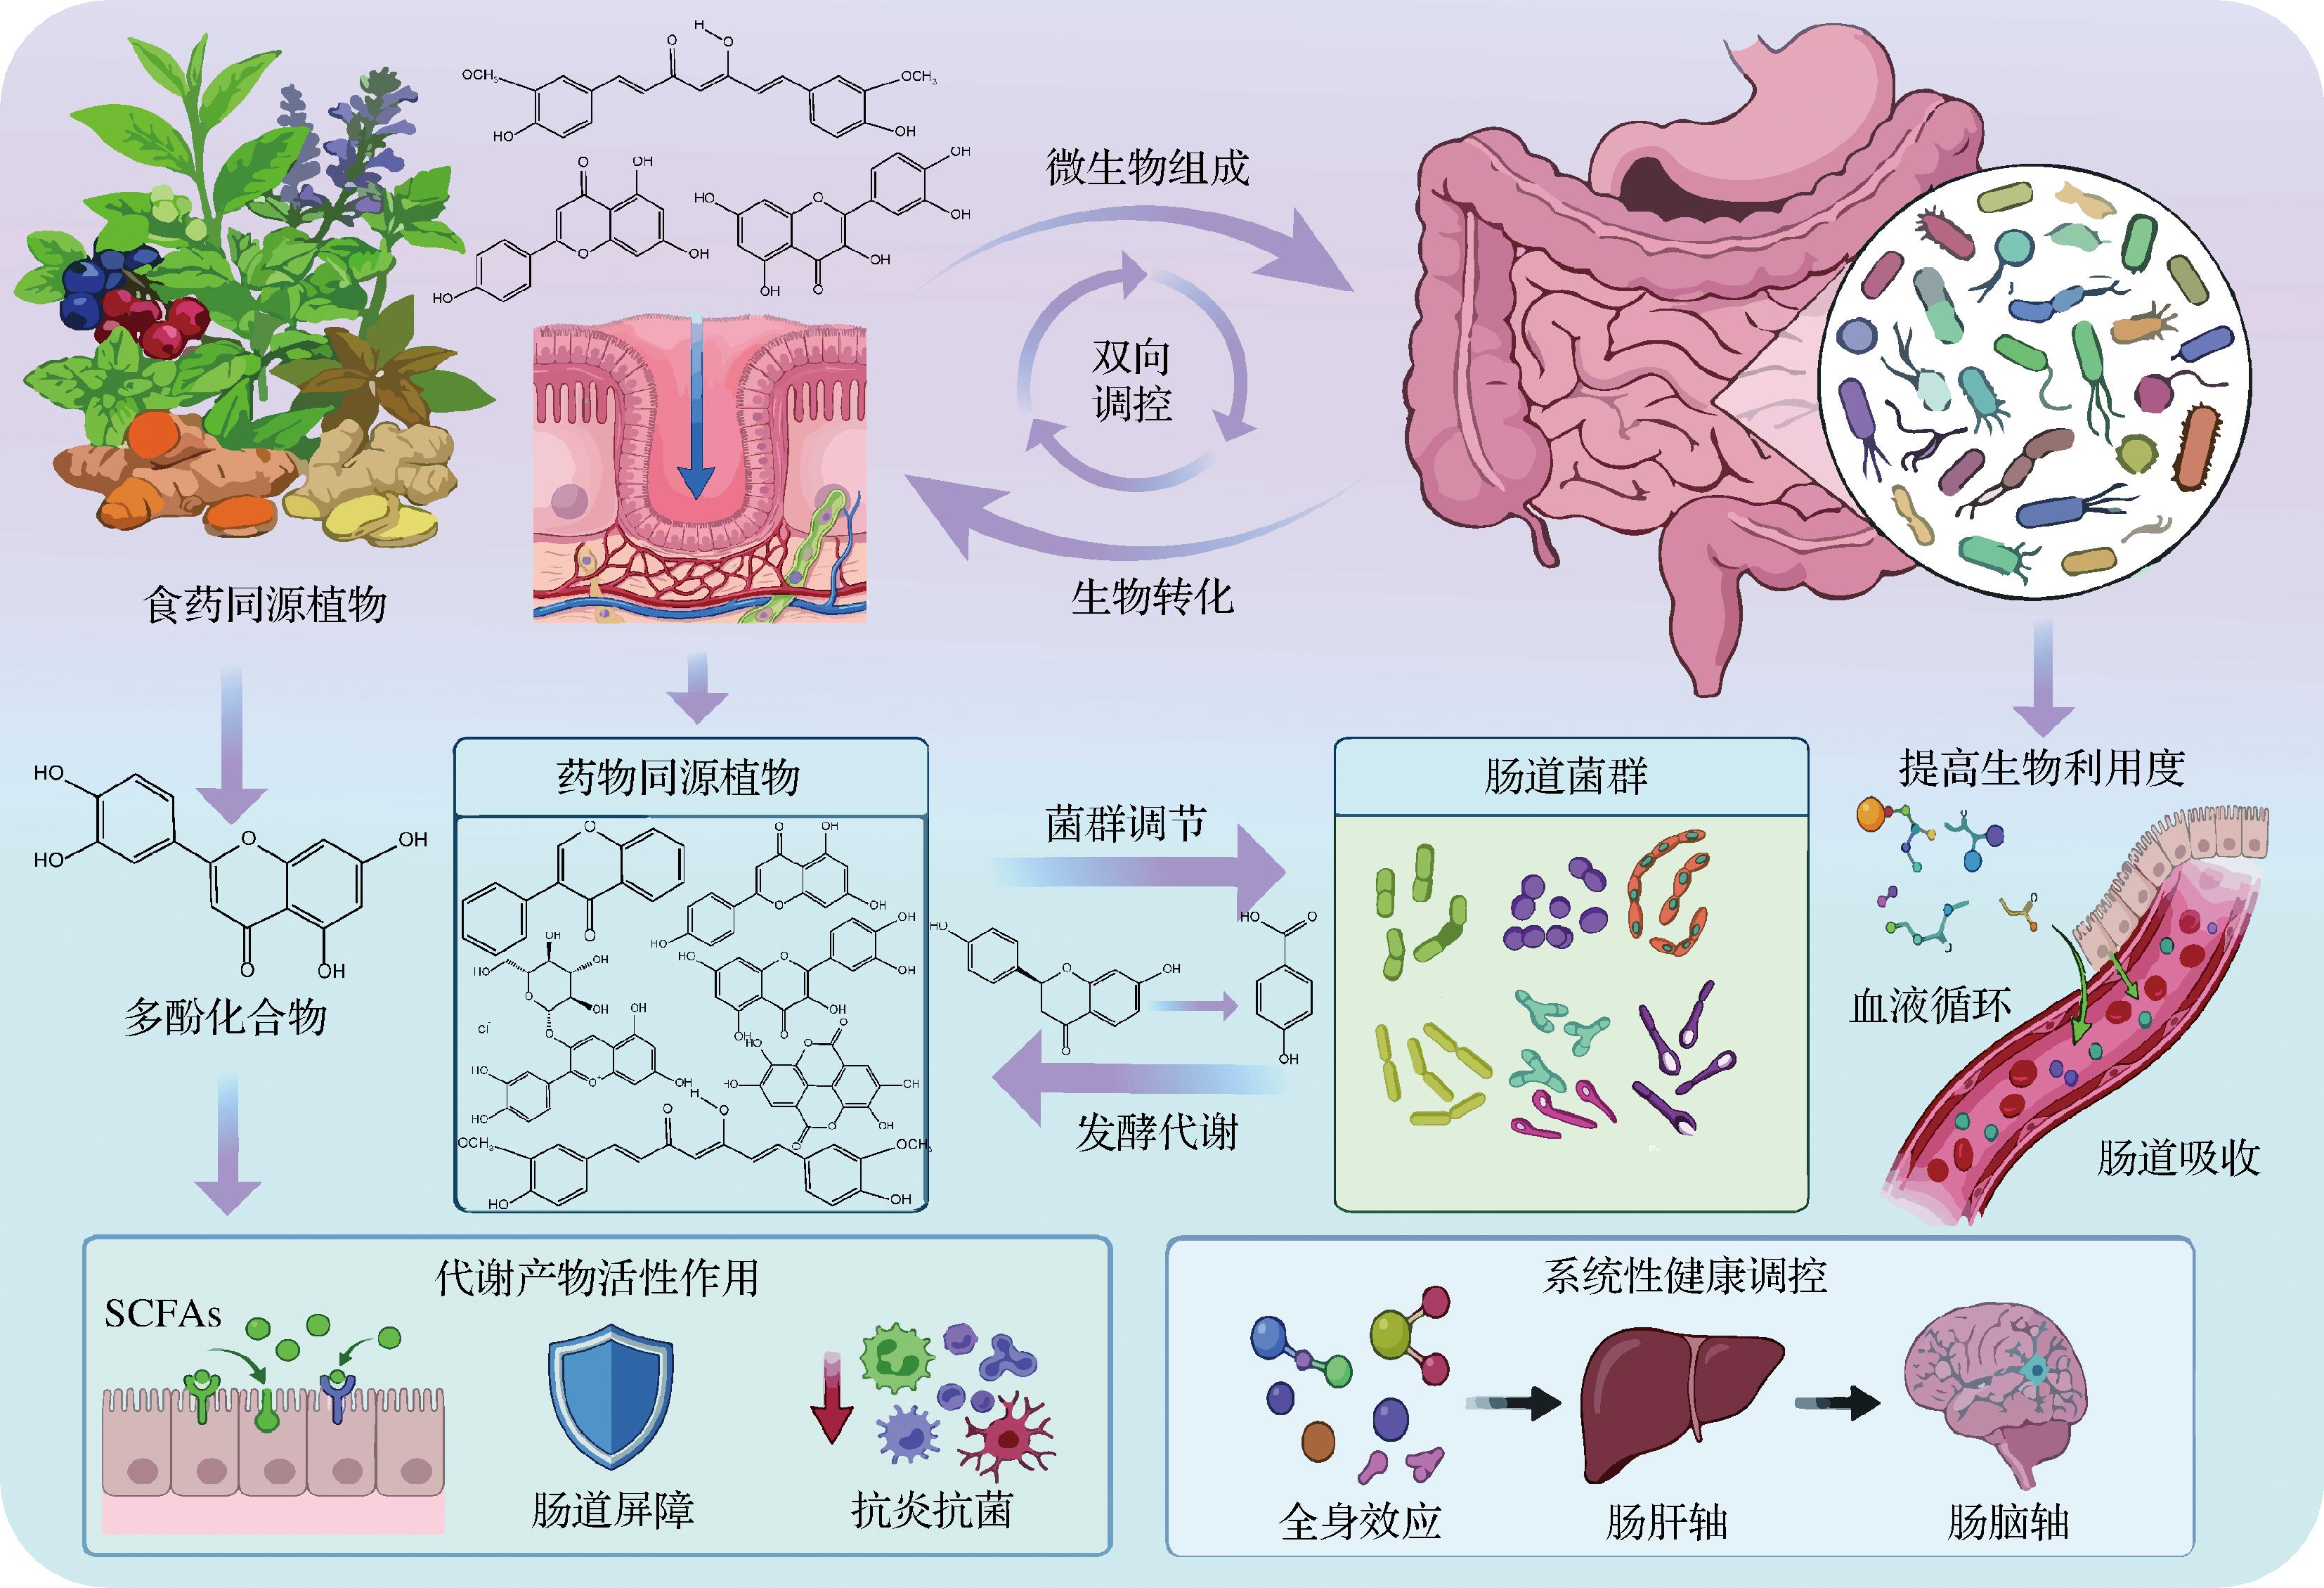
图1 多酚与肠道菌群的双向调控
Fig.1 Bidirectional regulation between polyphenols and gut microbiota
1 肠道菌群对食药同源植物多酚的分解代谢路径
食药同源植物多酚的体内功能发挥具有显著的微生物群依赖性。因多酚母体常表现出显著的生化惰性,其生物活性的释放往往滞后于结肠阶段的降解。肠道菌群通过分泌具有高度底物特异性的酶系如糖苷酶、还原酶、脱羟基酶等,对多酚进行差异化分解代谢。食药同源植物多酚根据其结构可分为黄酮类多酚与非黄酮类多酚,其中黄酮类多酚如橙皮苷[9]、槲皮素[10]、芹菜素[11]及花青素[12]主要通过肠道菌群介导的C环裂解机制,将C环骨架裂解为4-羟基苯乙酸与对羟基苯甲酸等小分子质量酚酸,且其代谢速率较易受糖苷键类型影响;而非黄酮类多酚如姜黄素[13]和白藜芦醇[14]则侧重于双键还原机制,通过分步氢化生成四氢姜黄素或二氢白藜芦醇等保留原骨架的还原产物;最终,两类多酚及其微生物代谢物均会在宿主肝肠组织中经历葡萄糖醛酸化或硫酸化等代谢路径以完成系统排泄或循环。这种由微生物驱动的级联反应,实现了对食药同源植物多酚结构的精准修饰,是实现其生物活性的重要途径(图2和图3)。
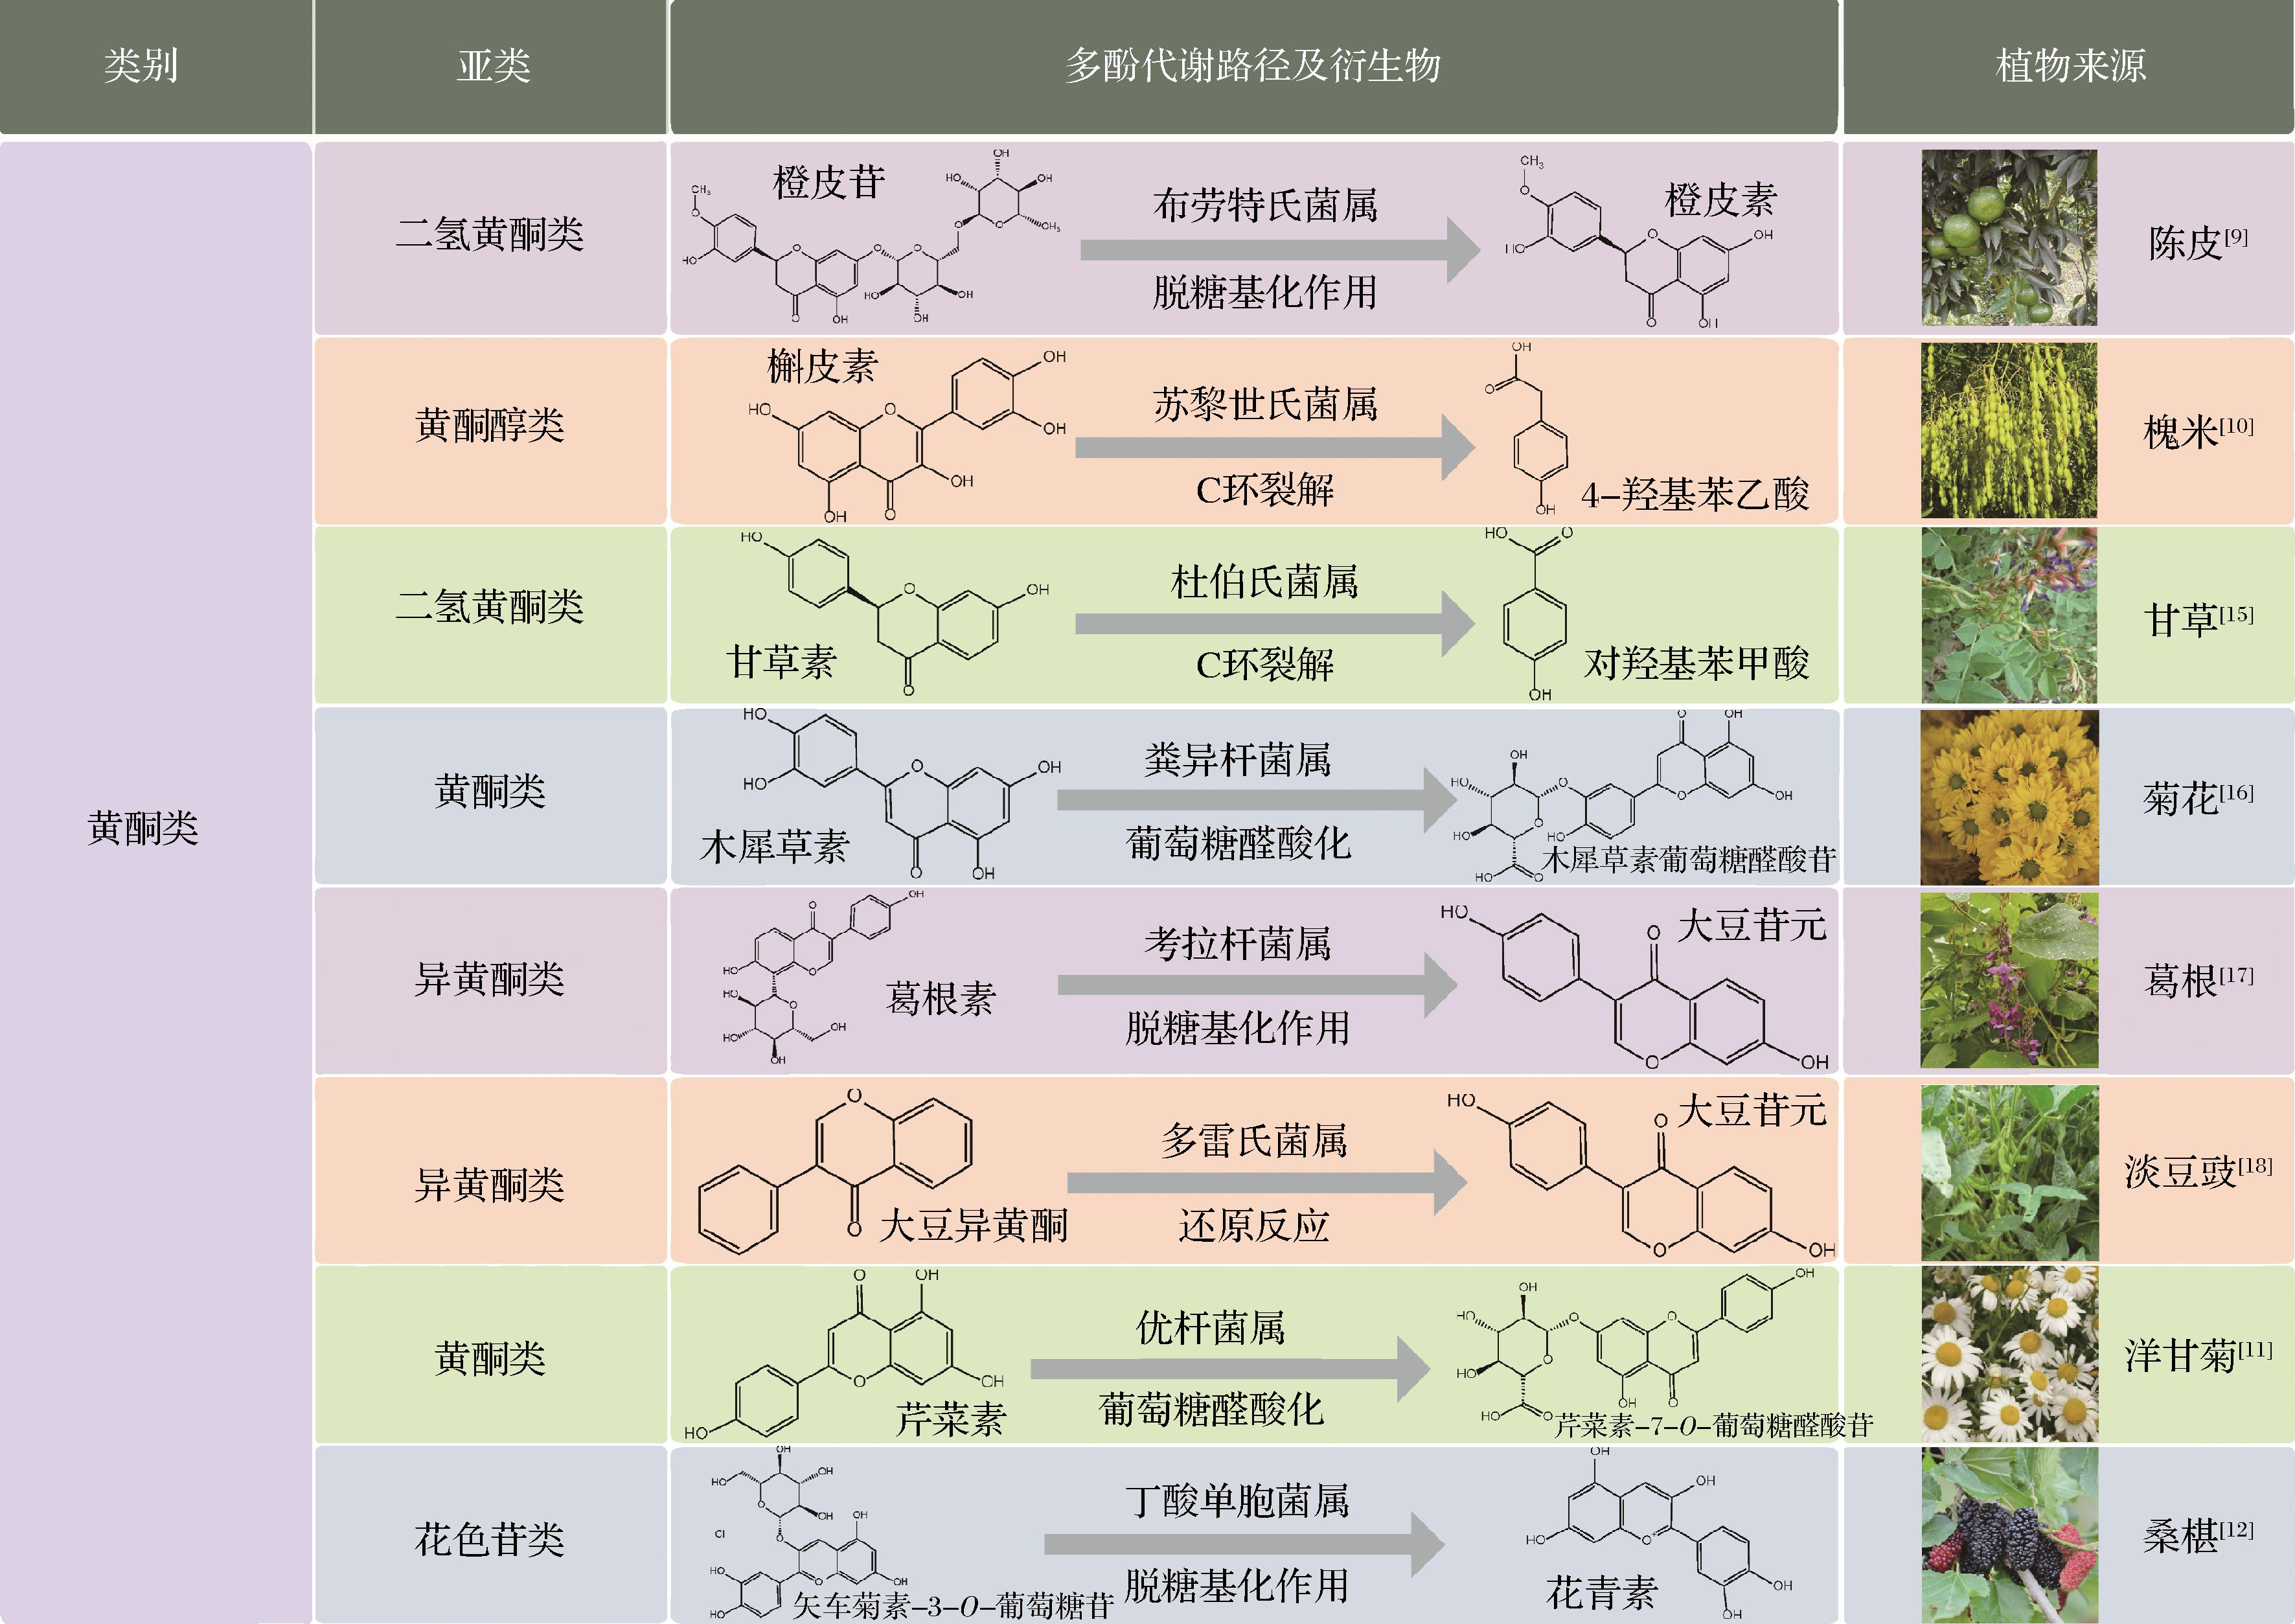
图2 黄酮类多酚的食药同源植物来源及代谢衍生物
Fig.2 Medicinal and food homologous lants sources and metabolic derivatives of flavonoid polyphenols
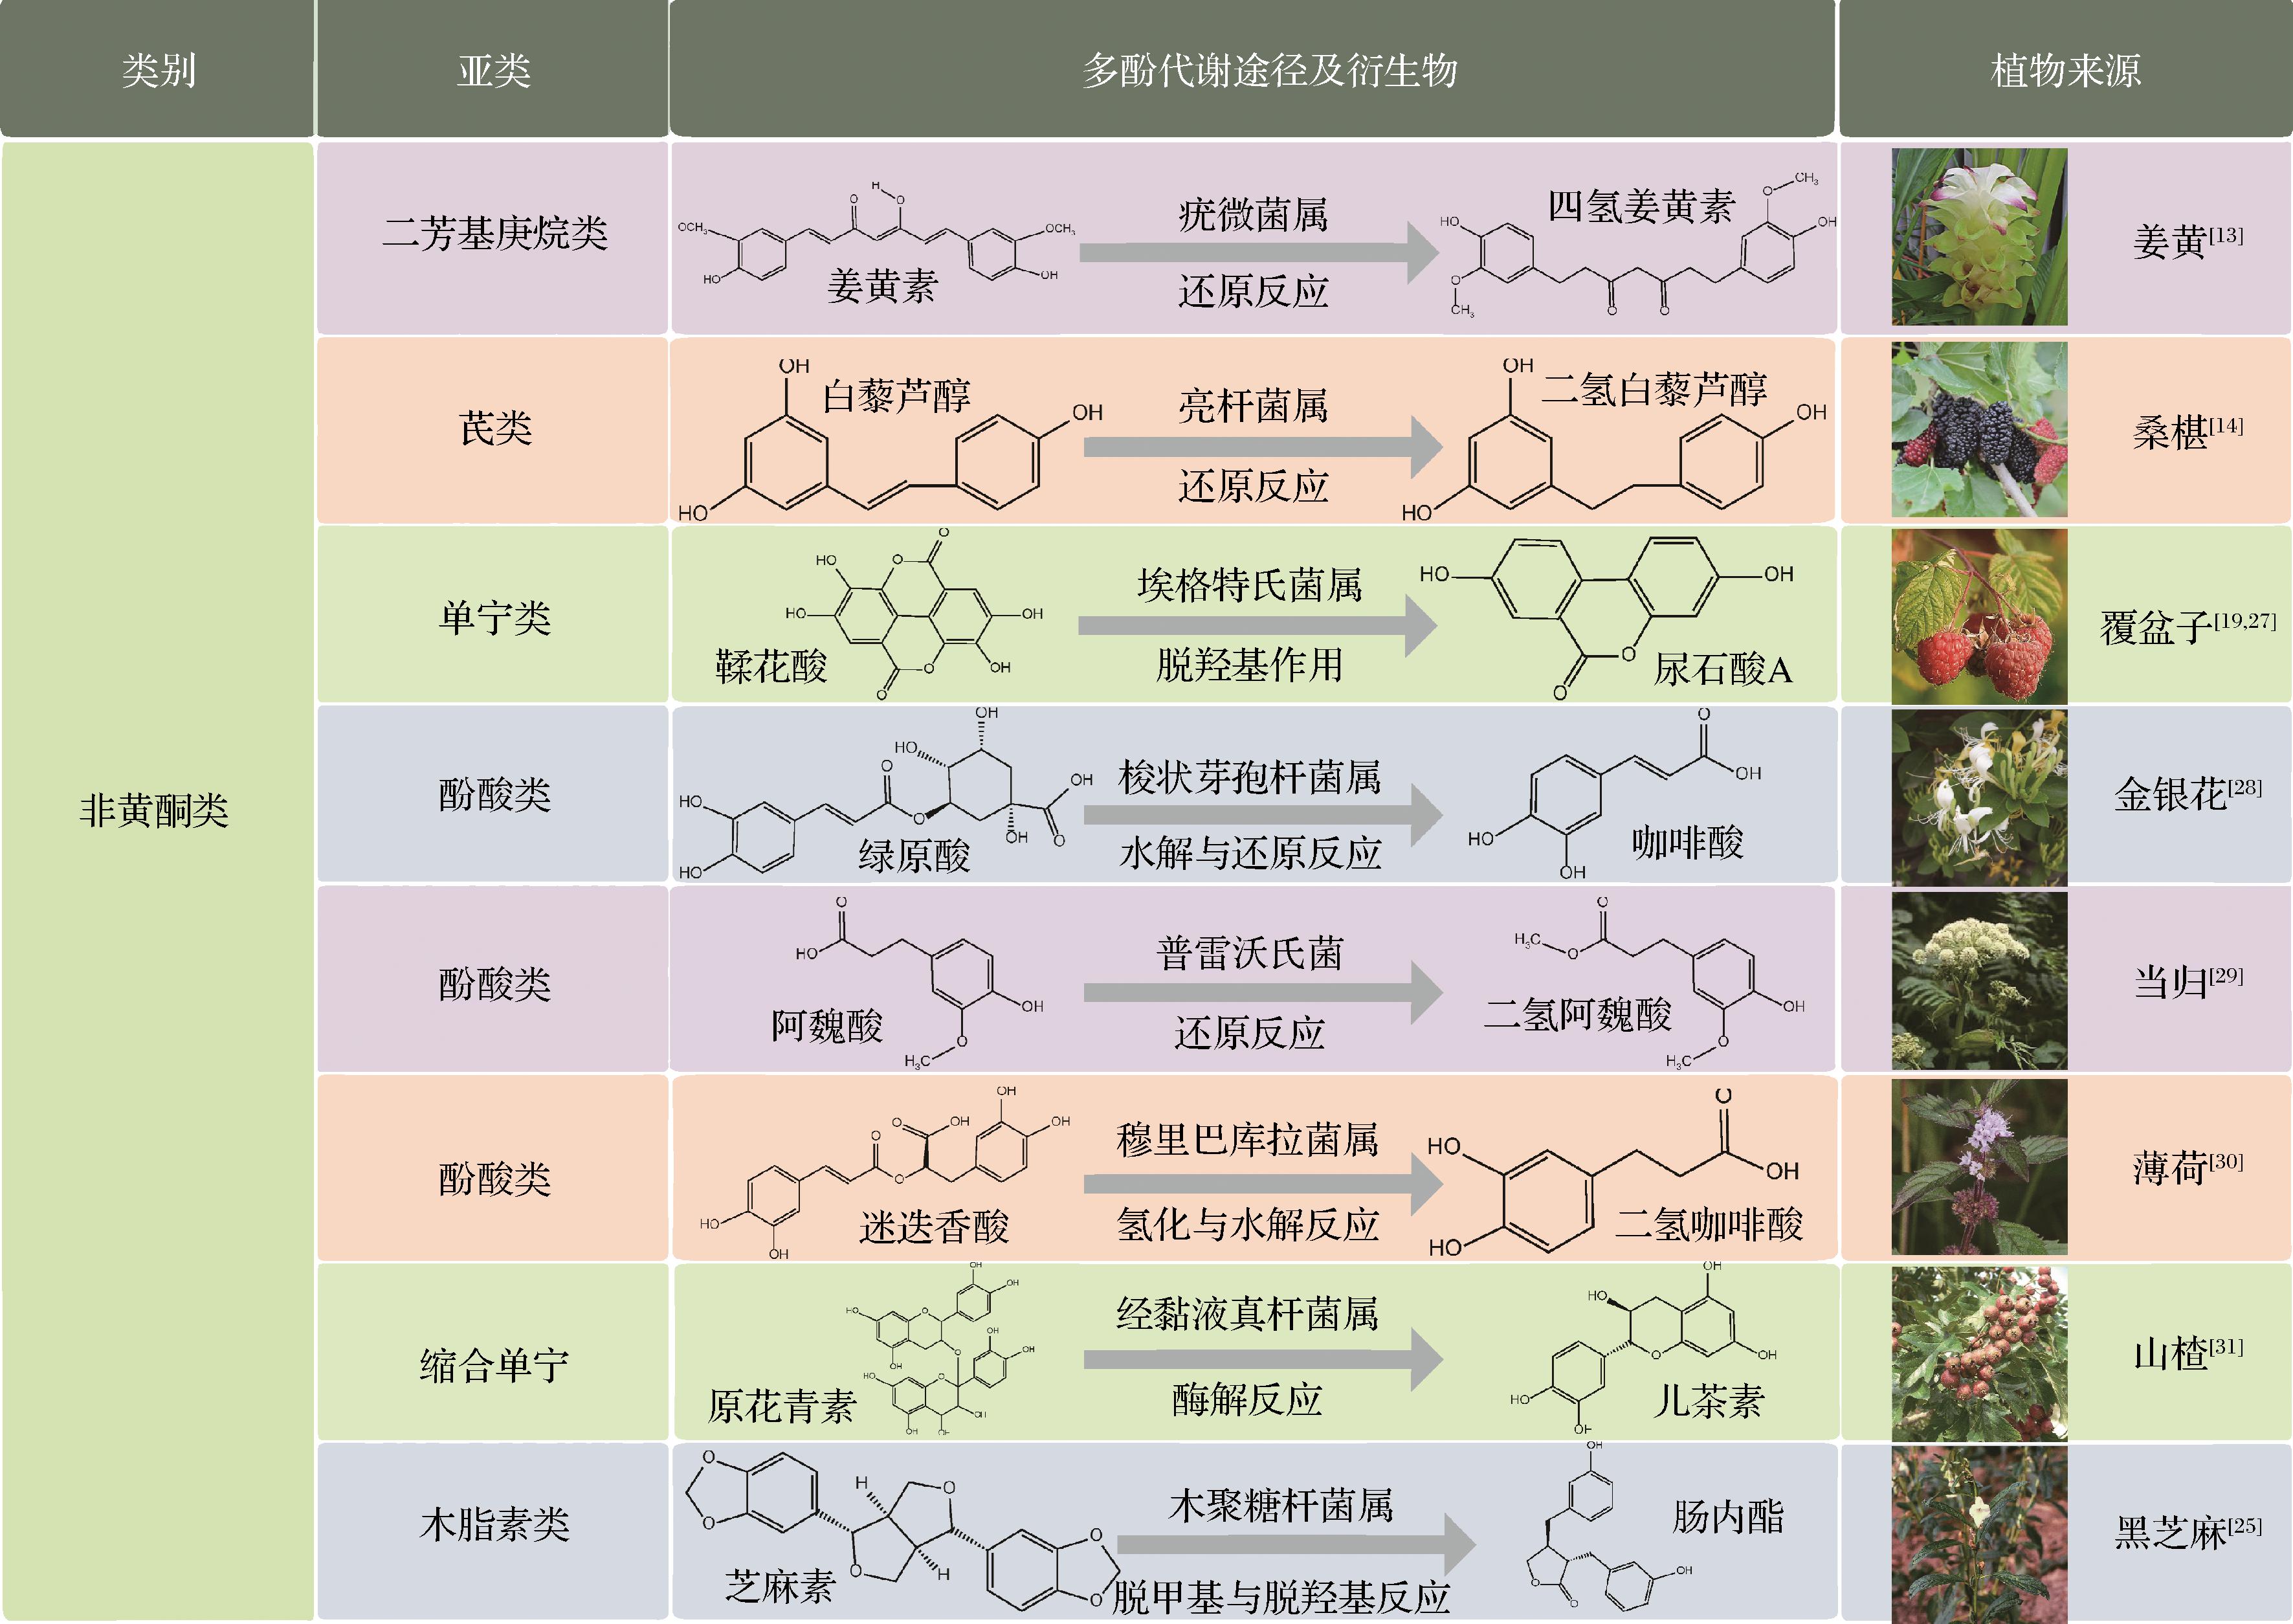
图3 非黄酮类多酚的食药同源植物来源及代谢衍生物
Fig.3 Medicinal and food homologous plants sources and metabolic derivatives of non-flavonoid polyphenols
1.1 糖苷键的水解与去糖基化
在食药同源植物中,多酚类化合物通常以O-糖苷或C-糖苷形式存在,其亲水性高但跨膜吸收能力受限。因此,去糖基化是多酚肠道代谢的关键步骤之一。定植于结肠的多种优势菌群如曲霉属、乳杆菌属、双歧杆菌属及芽孢杆菌属可通过分泌鞣酸酶、阿魏酸酯酶(ferulic acid esterase, FAE)、酚酸脱羧酶(phenolic acid decarboxylase, PAD)及β-糖苷酶等核心酶类精准裂解多酚[19]。这一代谢过程高度依赖肠道内特定菌株如植物乳植杆菌(Lactiplantibacillus plantarum)的催化路径,通过酯键水解、脱糖苷及脱羧等反应,将复杂的单宁、黄酮糖苷或结合态酚酸转化为没食子酸、槲皮素及4-乙烯基愈创木酚等高生物活性的单体物质[20]。与糖苷形式相比,苷元的脂溶性和膜通透性显著提高,使其更容易通过被动扩散或细胞膜的主动转运被结肠吸收,因此多酚类化合物进入肠道后,可以调节肠道菌群的结构组成和丰度,达到疾病预防和治疗作用。例如,矢车菊素-3-O-葡萄糖苷在模拟肠道发酵过程中可以被肠道菌群代谢为矢车菊素、原儿茶酸和间苯三酚醛等5种衍生物,进而影响乳杆菌属、拟杆菌属、丁酸单胞菌属和阿克曼氏菌属等特征菌群的组成,提高抗氧化活性[12]。
值得注意的是,C-糖苷多酚由于其糖基通过稳定的C—C直接连接于芳香环骨架,表现出显著高于O-糖苷的化学稳定性,对常规糖苷水解酶不敏感。其裂解过程往往依赖于具有特殊代谢途径的特定菌株或功能菌群,这些微生物分解代谢途径包含一些酶,这些酶催化氧化步骤,随后发生C—C断裂[21]。这种针对不同糖苷类型的特异性代谢差异,不仅决定了食药同源成分的生物利用度,也深刻影响了不同个体因菌群差异而产生的药效反应多样性。
1.2 杂环裂解与骨架降解
黄酮类化合物的C环是肠道菌群介导代谢的重要靶点,其裂解是黄酮类化合物发挥生物活性的关键步骤。肠道菌群通过表达多种功能性酶类参与黄酮类物质的代谢转化,产生结构更小且生物活性显著提升的代谢产物。以槲皮素为代表的黄酮醇类物质可在肠道菌群的作用下发生C环断裂,生成4-羟基苯乙酸、3, 4-二羟基苯乙酸等芳香酸类代谢物,不仅可促进短链脂肪酸的生成,同时对特定菌群如乳杆菌属具有调节作用[10]。肠道菌群介导的黄酮类多酚降解不仅提升生物活性,还在调节宿主免疫与代谢稳态中发挥重要作用。
肠道菌群通过一系列特异性酶促反应对植物化学物质进行结构性修饰,这些微生物代谢不仅改变底物的化学性质,也决定了其在宿主体内的生物学效应。例如肠道菌群中Mo-依赖型脱羟基酶对植物化学物质中邻二酚基团的特异性去羟基作用,反映出特定细菌酶催化能力对于生成关键代谢中间物的决定性作用[22]。这些代谢产物相较于原始黄酮化合物在循环系统中的半衰期通常更长,能够通过肝肠循环作用于远端靶组织,促成系统性抗氧化、抗炎及其他生理响应。此外,裂解位点的不同(C-1-C-2、C-3-C-4或C-4-C-10等)生成不同类别的苯酸、小分子代谢物,其化学特征、亲水性、芳香性等都会显著不同,影响其与宿主受体的结合亲和性、生物信号调节作用及抗氧化或抗炎功能[23]。
1.3 脱羟基作用与还原反应
肠道菌群介导的脱羟基反应是影响非黄酮类多酚如酚酸、单宁和木脂素类的生物利用度、生理效应及宿主健康的关键过程。此类反应主要由放线菌门(Actinobacteria)的核心结肠定植菌株驱动,通过表达含双钼辅基的特异性脱羟基酶进行高效催化。最新的功能基因组学与酶学研究已在Eggerthella lenta和Gordonibacter的基因簇中鉴定出多种脱羟基酶,这些酶能对多酚结构中的邻二酚基团进行高选择性的脱羟基修饰,表现出独特的位点选择性与对映体互补性,从而生成特定的肠内代谢物[24]。
微生物通过精准去除多酚A环或B环上的羟基,不仅重新分配了分子的极性与疏水性,还改变了其与生物膜及受体结合的理化性质,进而深刻影响其生物活性谱。以食药同源植物黑芝麻中的木脂素为例,肠道菌群通过去糖基化、去甲基化和脱羟基化等一系列酶促反应,将初级木脂素前体转化为具有显著生理活性的肠二醇和肠内酯。这些小分子代谢物被宿主吸收后,可特异性地激活雌激素受体,发挥抗炎作用[25]。
除脱羟基反应外,肠道菌群介导的还原反应也是决定多酚功能的重要步骤。还原反应通过改变分子中双键的构型与空间构象,影响其分子柔性以及与靶蛋白的几何匹配度。研究表明,大豆苷元[26]向高活性雌马酚的转化依赖特定功能菌的丰度。相较于母体化合物,Equol对雌激素受体,尤其是对ERβ具有更高的亲和力,从而在宿主体内介导更为显著的植物雌激素样调节作用。
1.4 高效活性代谢产物的生成
一些食药同源植物多酚的药理效应高度依赖于其肠道菌群代谢产物的生物活性。例如,鞣花单宁[27]存在于覆盆子、石榴等植物性食物中,在摄入后首先水解为鞣花酸,随后由特定肠道菌属介导内酯环形成及连续的脱羟基反应,最终生成不同类型的尿石素等代谢物。这些尿石素代谢物的生物利用度和生物效应与原始多酚显著不同,并显示出增强的线粒体自噬诱导、抗炎和代谢调节特性,可解释其在健康维护和慢性病预防中的潜在益处。近年来的研究结果表明,尿石素不仅在抗炎和抗氧化途径中具有调控作用,还通过增强线粒体功能和能量代谢参与慢性病的病理过程。
2 食药同源植物多酚对肠道菌群结构的重塑及其功能调节机制
多酚不仅作为肠道菌群的底物被转化,同时通过对肠道微生态环境的调节选择性地富集或抑制特定细菌群落,从而重构肠道微生态。这种双重作用机制使得多酚在宿主与微生物互作中表现出独特的生态调控特征。生物转化中多酚主要衍生物及对肠道菌群丰度影响见表1。
表1 生物转化中多酚主要衍生物及对肠道菌群丰度影响
Table 1 Major polyphenol derivatives in biotransformation and their effects on gut microbiota abundance
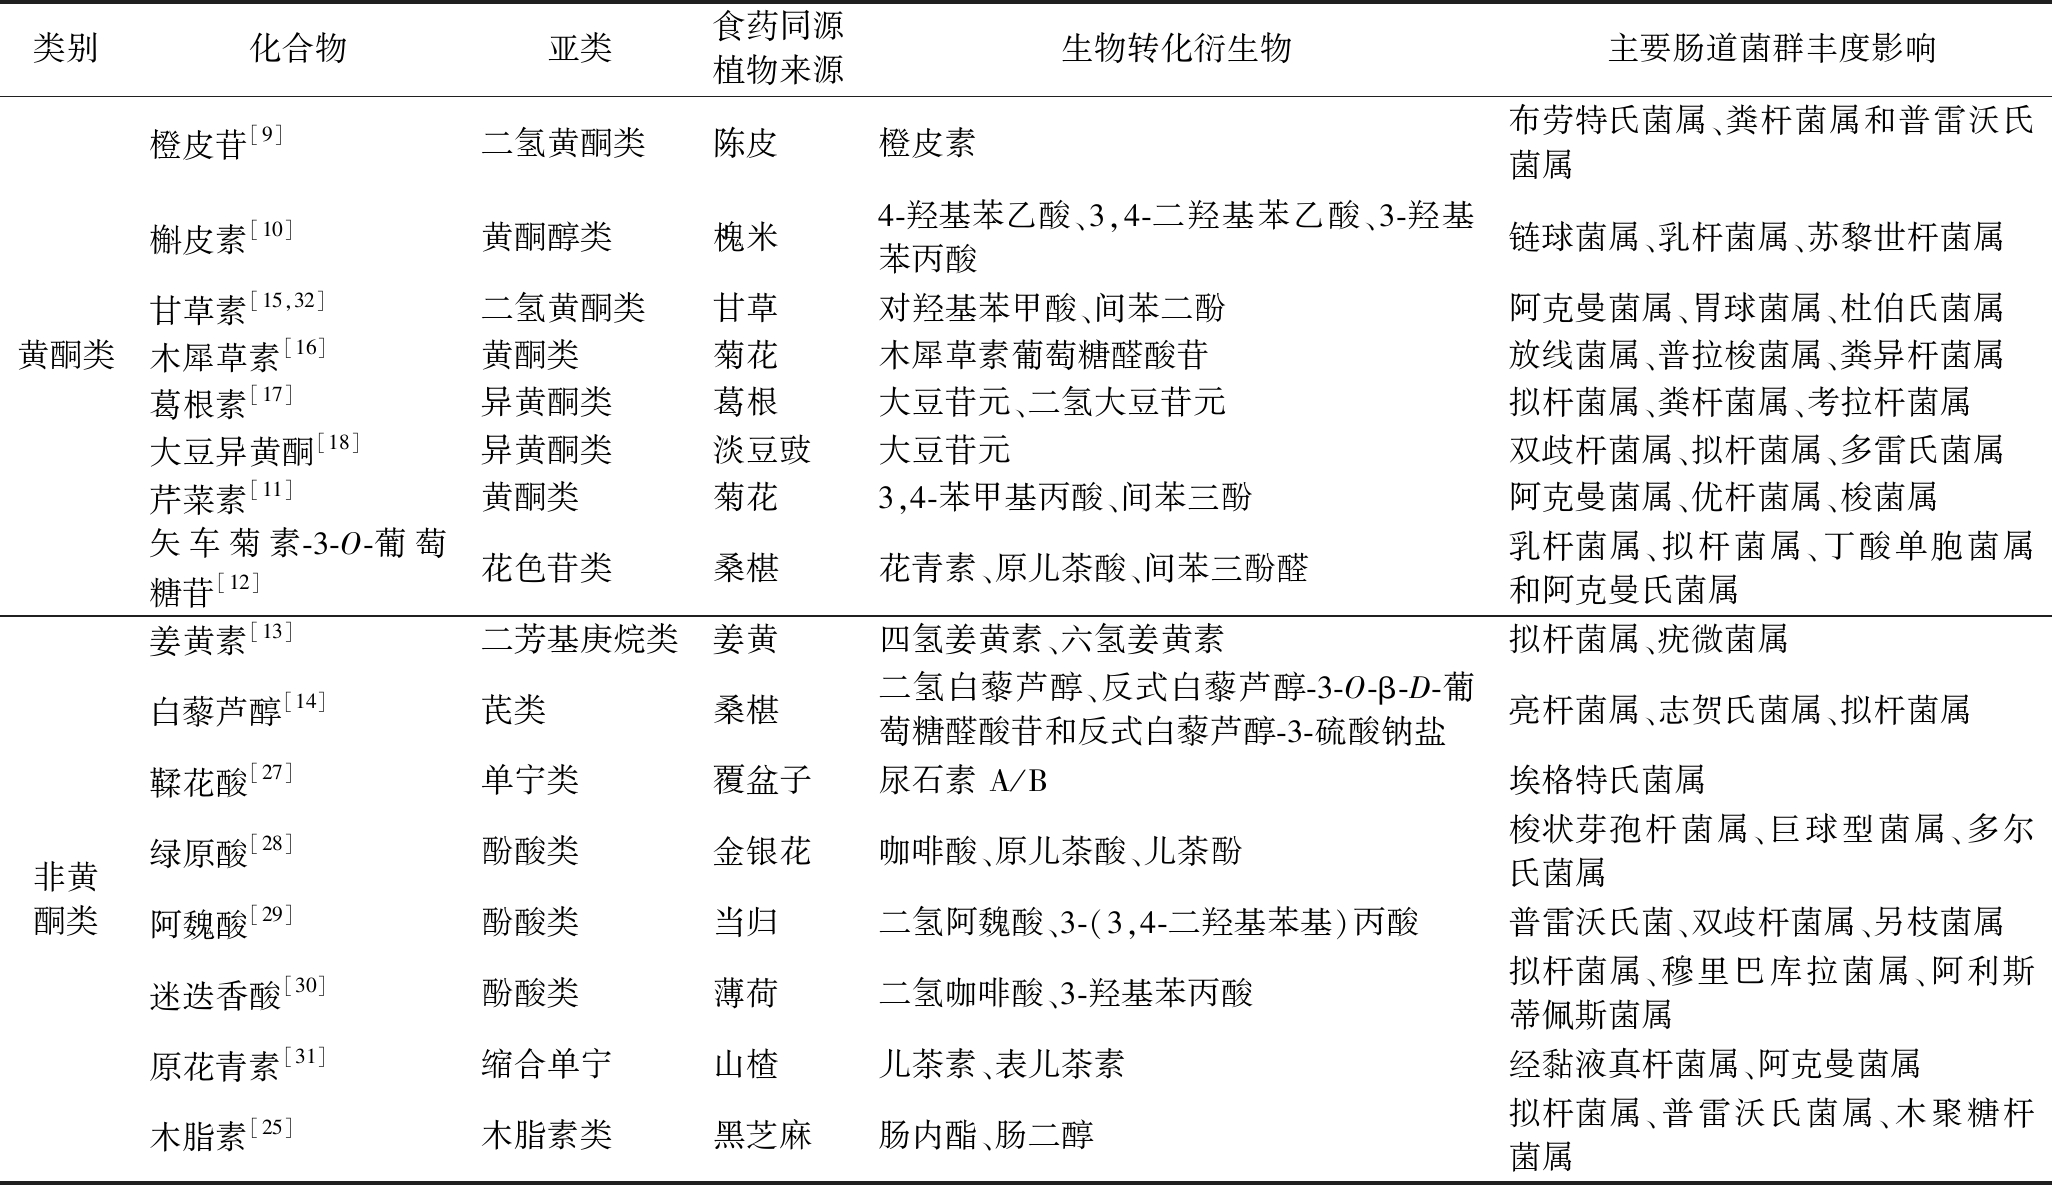
类别化合物亚类食药同源植物来源生物转化衍生物主要肠道菌群丰度影响黄酮类橙皮苷[9]二氢黄酮类陈皮橙皮素布劳特氏菌属、粪杆菌属和普雷沃氏菌属槲皮素[10]黄酮醇类槐米4-羟基苯乙酸、3,4-二羟基苯乙酸、3-羟基苯丙酸链球菌属、乳杆菌属、苏黎世杆菌属甘草素[15,32]二氢黄酮类甘草对羟基苯甲酸、间苯二酚阿克曼菌属、胃球菌属、杜伯氏菌属木犀草素[16]黄酮类菊花木犀草素葡萄糖醛酸苷放线菌属、普拉梭菌属、粪异杆菌属葛根素[17]异黄酮类葛根大豆苷元、二氢大豆苷元拟杆菌属、粪杆菌属、考拉杆菌属大豆异黄酮[18]异黄酮类淡豆豉大豆苷元双歧杆菌属、拟杆菌属、多雷氏菌属芹菜素[11]黄酮类菊花3,4-苯甲基丙酸、间苯三酚阿克曼菌属、优杆菌属、梭菌属矢车菊素-3-O-葡萄糖苷[12]花色苷类桑椹花青素、原儿茶酸、间苯三酚醛乳杆菌属、拟杆菌属、丁酸单胞菌属和阿克曼氏菌属非黄酮类姜黄素[13]二芳基庚烷类姜黄四氢姜黄素、六氢姜黄素拟杆菌属、疣微菌属白藜芦醇[14]芪类桑椹二氢白藜芦醇、反式白藜芦醇-3-O-β-D-葡萄糖醛酸苷和反式白藜芦醇-3-硫酸钠盐亮杆菌属、志贺氏菌属、拟杆菌属鞣花酸[27]单宁类覆盆子尿石素 A/B埃格特氏菌属绿原酸[28]酚酸类金银花咖啡酸、原儿茶酸、儿茶酚梭状芽孢杆菌属、巨球型菌属、多尔氏菌属阿魏酸[29]酚酸类当归二氢阿魏酸、3-(3,4-二羟基苯基)丙酸普雷沃氏菌、双歧杆菌属、另枝菌属迷迭香酸[30]酚酸类薄荷二氢咖啡酸、3-羟基苯丙酸拟杆菌属、穆里巴库拉菌属、阿利斯蒂佩斯菌属原花青素[31]缩合单宁山楂儿茶素、表儿茶素经黏液真杆菌属、阿克曼菌属木脂素[25]木脂素类黑芝麻肠内酯、肠二醇拟杆菌属、普雷沃氏菌属、木聚糖杆菌属
2.1 类益生元效应与益生菌的选择性富集
多酚不仅表现出类益生元效应,同时影响特定益生菌的选择性富集,在摄入多酚后,这些化合物及其微生物降解产物可改变肠腔氧化还原电位或干扰细菌信号传导等多种途径,对肠道菌群中的优势菌株表现出类益生元效应。例如,来源于甘草的甘草素[32]通过对肠道菌群如阿克曼菌属的调控以及对内质网应激的缓解作用改善肠道炎症。研究表明,摄入葡萄多酚[33]显著促进了黏液嗜酸阿克曼菌(Akkermansia muciniphila)的生长,并降低了厚壁菌门与拟杆菌门的比例,增加肠道中胰高血糖素原的基因表达,胰高血糖素原是促进胰岛素生成和维持肠道屏障完整性的蛋白质前体,预防饮食诱导的肥胖和代谢性疾病。这些效应与传统益生元的作用模式具有相似性,即通过优化菌群结构来构建健康的肠道微生态。
同时,多酚对关键益生菌株也具有正向调节作用。研究表明,根皮苷[7]能选择性促进乳酸杆菌(Lactobacillus)增殖,并通过协同代谢途径,逐步降解为根皮素及酚酸类衍生物,在调节肠道微生态平衡的同时产生具有更高生物活性的代谢产物,进而改善宿主健康。A. muciniphila作为一种以黏蛋白为底物的革兰氏阴性菌,能降解黏液层黏蛋白并通过促进杯状细胞分泌O-糖基化的黏液成分来强化肠道黏膜屏障功能。多酚的类益生元效应可显著增加A. muciniphila的相对丰度,同时改善了炎症反应和葡萄糖耐受性[34]。这种微生态重塑体现了多酚调节肠道菌群及改善优势菌群结构的能力,对维持或恢复宿主肠道稳态具有重要健康意义。
2.2 对病原微生物的多维协同干预机制
食药同源植物多酚的抗微生物作用首先源于其独特的分子结构对细菌膜系统的直接物理化学干扰。多酚类化合物兼具苯环(疏水性)和酚羟基(极性),这种两亲性使其能够通过疏水作用、氢键及静电引力与细菌磷脂双分子层中的脂质和膜蛋白结合,进而嵌入或破坏膜结构,导致膜通透性改变及解体[35]。
在造成膜损伤的基础上,多酚还能进一步干预病原微生物的群体感应(quorum sensing, QS)系统与协同行为,抑制毒力因子的合成及生物膜的形成。例如,平卧菊三七(Gynura procumbens)叶的多酚提取物在体外实验中被证实能通过与QS受体分子结合,抑制铜绿假单胞菌(Pseudomonas aeruginosa)的QS系统(LasR和RhlR受体),从而降低其毒力因子水平并阻碍生物膜形成[36]。这种“信号阻断效应”不仅从源头上抑制了毒力因子的生物合成,还通过削弱菌群间的协同行为破坏了生物膜的稳态,显著提升了病原体对宿主免疫系统及抗生素的敏感性。
此外,多酚的金属螯合能力从营养竞争层面放大其抑菌效应。多酚作为强效抗氧化剂,其酚羟基和芳香环结构能与环境中的过渡金属形成稳定的螯合物[37]。这一过程有效剥夺了病原菌生长代谢所需的游离铁元素,打破了其能量代谢平衡,从而通过多靶点协同机制抑制病原菌,并间接促进宿主肠道微生态的健康稳态。
2.3 SCFAs代谢谱的优化
多酚的干预显著上调了肠道内典型产酸菌的相对丰度,从而提升了SCFAs,特别是乙酸、丙酸及丁酸的生物合成水平。例如,槲皮素通过增加乳杆菌属和真杆菌属(Eubacterium)的丰度影响SCFAs中乙酸的产量,形成健康的肠道微生态[10]。来源于陈皮的橙皮苷的代谢过程还涉及酚类丙酸衍生物如3-(4-羟基苯基)丙酸的生成,通过富集普雷沃氏菌属(Prevotella)、布劳特氏菌属(Blautia)和粪杆菌属(Faecalibacterium)等有益菌群,显著提升丙酸的产量。这些产物作为多酚C环裂解后的核心中间体,在维持肠道内稳态及发挥抗炎活性中扮演着重要角色[9]。研究发现红酒多酚干预可显著提高代谢综合征患者肠道中普拉梭菌(Faecalibacterium prausnitzii)和罗氏菌属(Roseburia)的比例,这2种细菌是丁酸及其他SCFAs的重要生产者;同时伴随潜在致病菌丰度的降低。丁酸作为肠上皮细胞的主要能量来源和关键抗炎分子,对维护肠道屏障稳态具有至关重要的作用[38]。
作为结肠上皮细胞的首选能源底物,丁酸在维持肠道内稳态中发挥着多重调控作用。首先,丁酸的高效代谢消耗了大量局部氧气,产生低氧环境,维持有利于肠道菌群生存的肠腔厌氧环境。同时丁酸可以刺激不同细胞类型中的芳烃受体(aryl hydrocarbon receptor, AhR)、G蛋白偶联受体(protein-coupled receptor,GPR)41和GPR109A,并抑制组蛋白去乙酰化酶(histone deacetylases, HDAC),从而稳定肠道屏障功能并减轻炎症反应[39]。
2.4 肠道物理屏蔽与免疫屏障的强化
多酚促进关键紧密连接蛋白的表达,从而增强上皮细胞间的物理屏障。多酚改善肠屏障的效应与降低循环脂多糖(lipopolysaccharides, LPS)浓度、减少炎症标志物升高密切相关,间接降低系统性炎症水平[39]。在免疫调控层面,多酚驱动的菌群特征性改变能够诱导树突状细胞(dendritic cells, DCs)向致耐受表型分化,进而精确调控辅助性T细胞17(T helper 17, Th17)/调节性T细胞(regulatory T cells, Treg)的免疫平衡。研究证明,多酚可通过调节Th17/Treg免疫轴和上调紧密连接蛋白来增强肠道屏障的完整性,同时抑制促炎性Th17反应,促进Treg介导的免疫耐受[40]。
3 食药同源植物多酚-菌群轴对宿主系统性健康的调控机制
如图4所示,食药同源植物多酚与肠道菌群的双向互作,并非仅局限于肠腔内的生物转化,而是通过复杂的体液途径、神经通路及免疫介导,形成了一个辐射全身的调控网络。本部分将系统阐述这一双向调控轴如何在分子水平上影响宿主的代谢稳态、神经保护、心血管健康及免疫平衡。
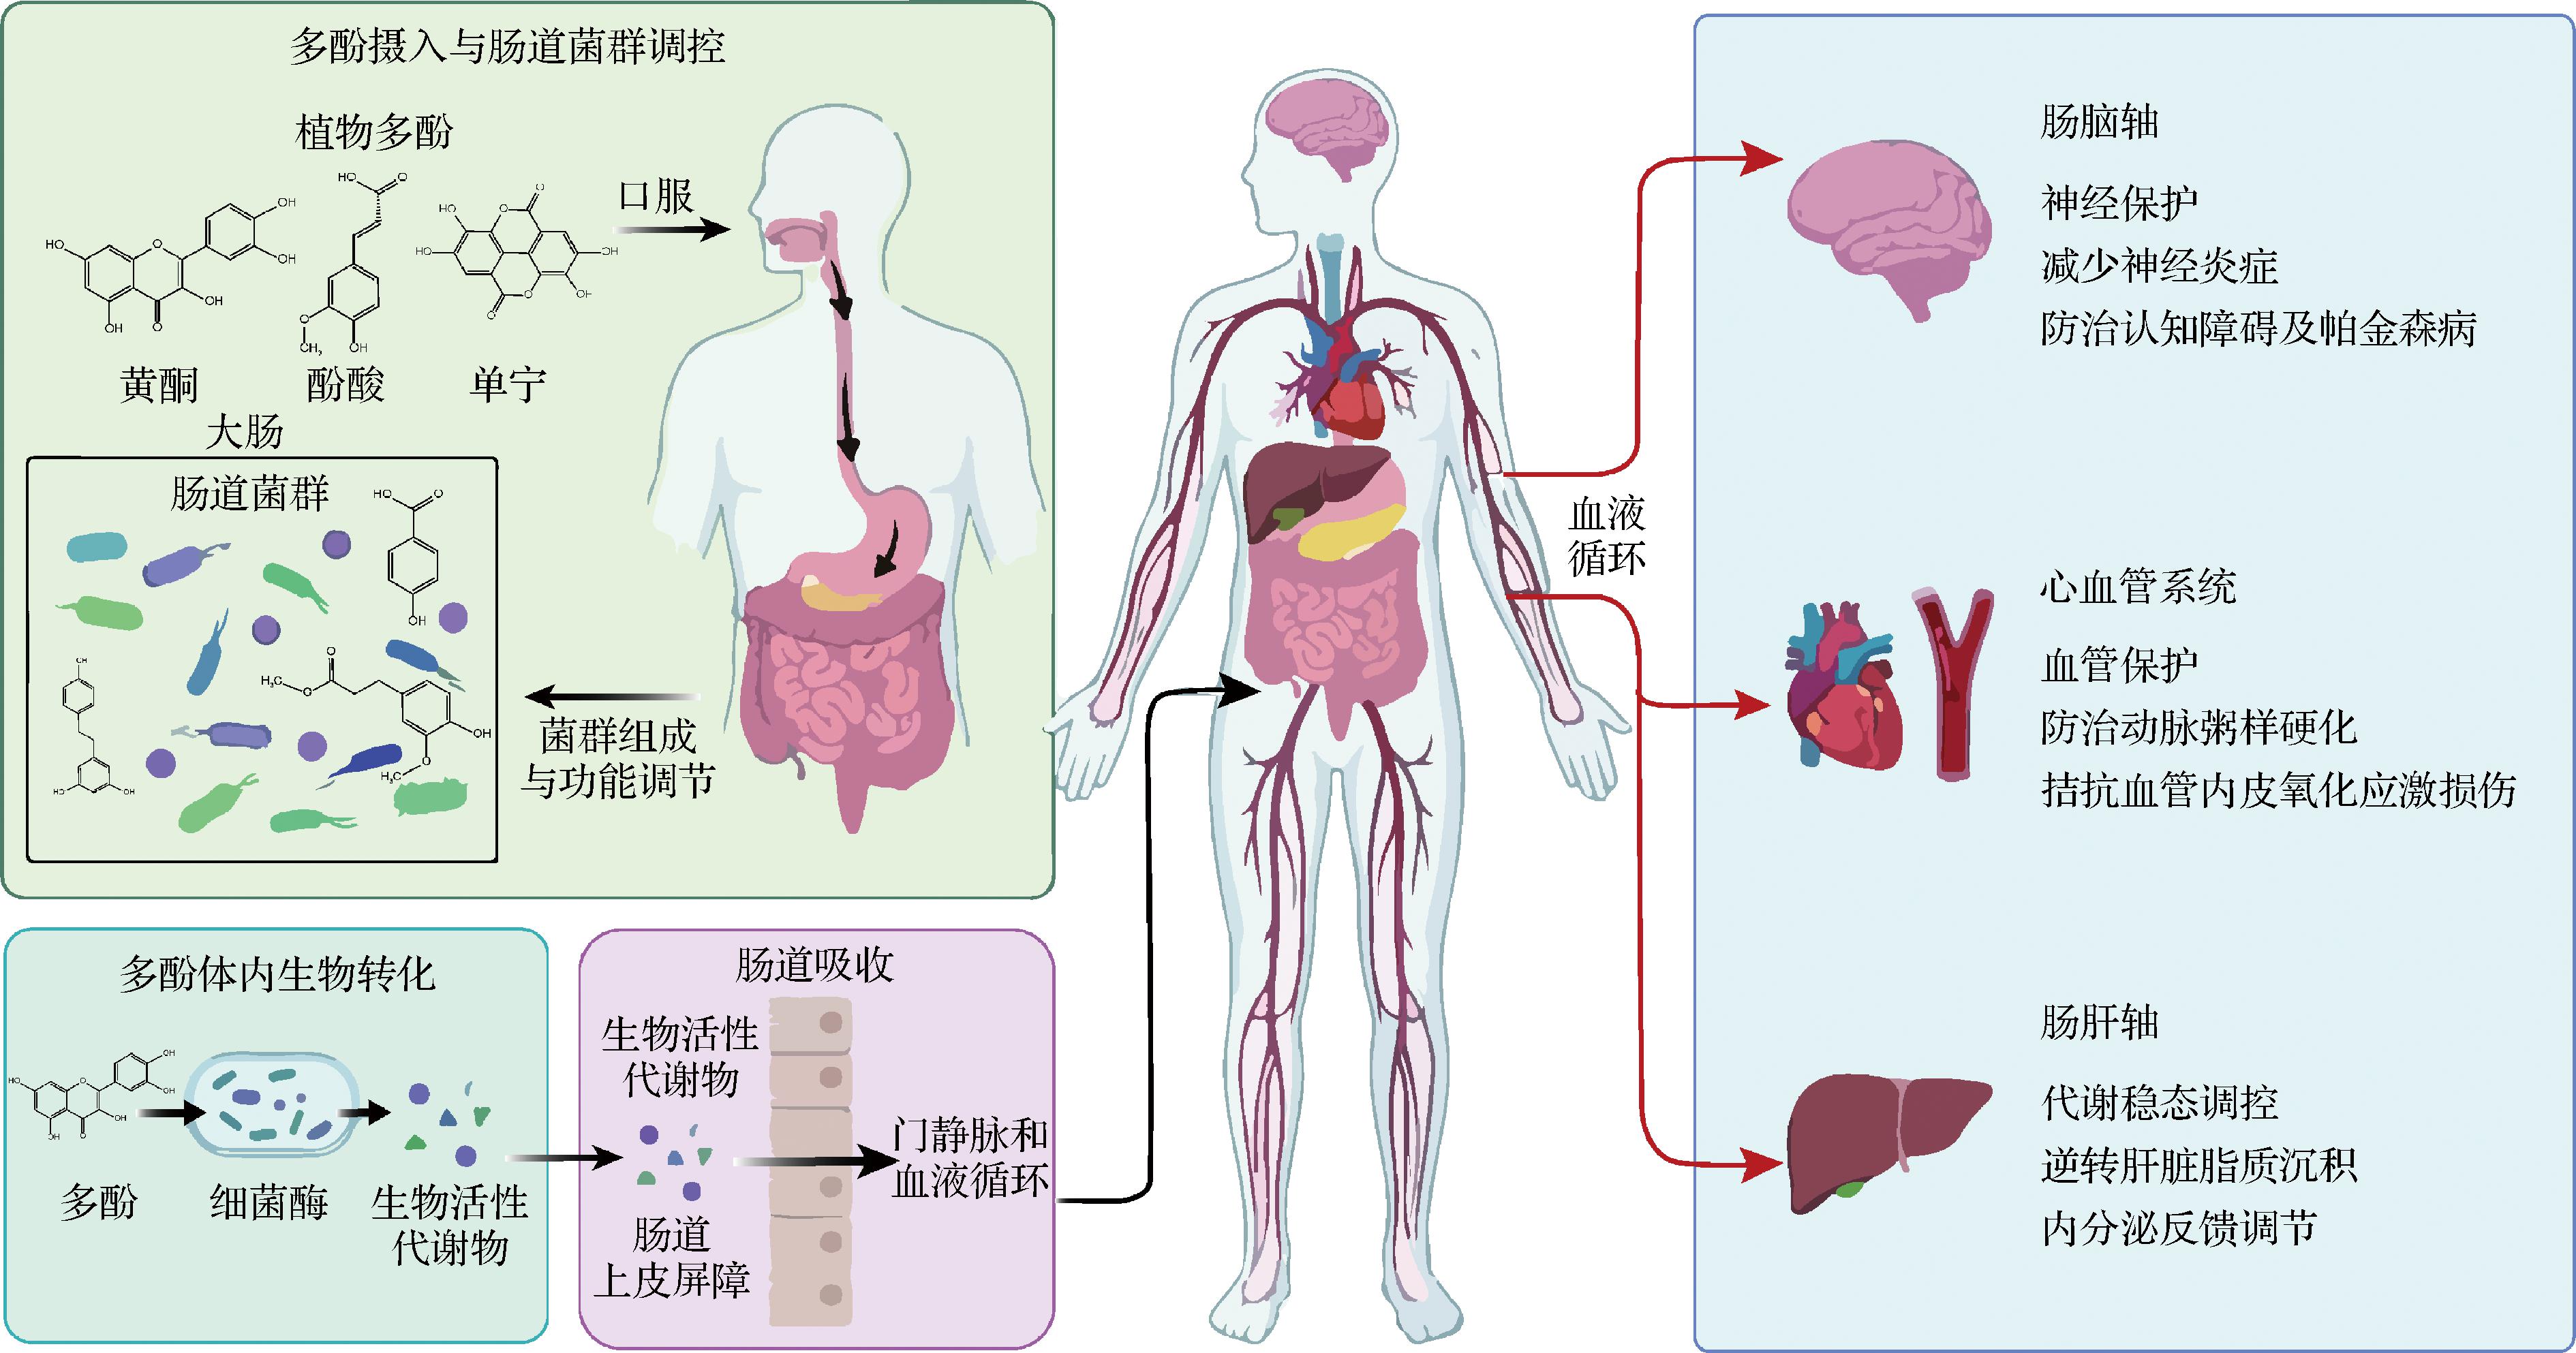
图4 食药同源植物多酚摄入与肠道菌群调控
Fig.4 Intake of polyphenols from MFH plants and regulation of gut microbiota
3.1 肠-肝轴:多酚介导的代谢稳态重塑
多酚不仅能通过肠-肝轴影响肠道微生态、屏障功能及肝脏代谢,从而减轻代谢相关脂肪性肝病的损伤,还能通过调节菌群代谢物、恢复肠道屏障完整性并调控肝内信号通路,改善脂质代谢与炎症状态。溃疡性结肠炎的发病机制与肠-肝轴的交互密切相关。木犀草素能显著富集肠道内如异杆菌属(Allobaculum)和多氏拟杆菌(Bacteroides dorei)等特定有益菌群,进而上调紧密连接蛋白(zonula occludens-1,ZO-1)的表达以修复肠道屏障,阻断肠源性内毒素即为来源于肠道内革兰氏阴性菌细胞壁的LPS进入肝脏,最终通过抑制TLR4/NF-κB炎症信号通路,显著减轻肝脏的炎症反应与脂质蓄积[16]。研究发现,葛根素通过“肠-肝轴”的多重机制改善酒精性肝病,首先增加Bacteroides等益生菌丰度改善肠道菌群失衡,随后其肠道代谢产物大豆苷元通过抑制MAPK通路减轻炎症浸润,并激活Nrf2通路增强抗氧化防御,从而协同缓解酒精诱导的肝损伤与氧化应激[28]。绿原酸可有效降低结肠炎小鼠体内的LPS、丙二醛(malondialdehyde, MDA)和IL-6水平,其抗炎机制主要依赖于改善肠道菌群失调,促进有益菌的生长,并调节SCFAs(特别是丁酸和异丁酸)的生成[41]。SCFAs经门静脉进入肝脏后,作为关键化学信号激活AMPK/ SIRT1/PGC-1α通路,进而抑制脂肪酸合成、增强脂肪酸氧化并减轻肝脏脂肪沉积[42]。
此外,肠道菌群中的特定菌株表达胆盐水解酶(bile salt hydrolase, BSH),负责将结合型胆汁酸脱偶联为非结合态胆汁酸。这一反应不仅改变了胆汁酸的亲水/亲脂比率,也重塑了胆汁酸池的构成。食药同源植物中的多酚如姜黄素和表没食子儿茶素没食子酸酯(epigallocatechin-3-gallate, EGCG)通过改变肠道菌群结构及BSH活性,间接影响胆汁酸代谢谱。胆汁酸代谢谱能够激活肠道法尼醇X受体(farnesoid X receptor, FXR)诱导分泌肠源性激素FGF15/19,经血液循环反馈至肝脏后与FGFR4受体结合可下调CYP7A1的表达,从而实现对胆固醇代谢与胆汁酸合成的精密负反馈调节[43]。
3.2 肠-脑轴:微生物代谢产物的神经保护机理
近年来,食药同源成分在防治认知障碍(Alzheimer’s disease, AD)及帕金森病(Parkinson’s disease, PD)中的潜力备受关注,其核心逻辑在于多酚代谢产物对中枢神经系统的间接与直接保护。尽管多酚难以穿过血-脑屏障,但其微生物产物如尿石素A(urolithin A, UA)及3, 4-二羟基苯乙酸具有较强的跨屏障能力。UA是由肠道益生菌如肠梭菌属和戈登杆菌属代谢且具有血脑屏障渗透性的天然化合物。UA可通过激活PINK1/Parkin 介导的线粒体自噬、抑制cGAS/STING及NF-κB炎症通路、以及激活Nrf2抗氧化体系,发挥多靶点的神经保护作用。在AD、PD、中风及辐射性脑损伤等多种病理中,证明了其在抗炎、抗衰老及抗凋亡方面的显著潜力[44]。原花青素(proanthocyanidins, PAs)生物利用度极低,必须依靠肠道菌群降解为更易吸收的如5-(3′, 4′-二羟基苯基)-γ-戊内酯和各类酚酸等小分子代谢物,这些产物能通过血脑屏障抑制神经炎症和氧化应激;同时,原花青素作为类益生元能够显著重塑肠道菌群,通过提升A. muciniphila等益生菌丰度,降低厚壁菌门/拟杆菌门比例,改善菌群失调引发的代谢紊乱,从而实现改善记忆能力和延缓大脑衰老的系统性效应[31]。
多酚可以通过富集乳杆菌属及双歧杆菌属,促进肠道内γ-氨基丁酸(γ-aminobutyric acid, GABA)及5-羟色胺(5-hydroxytryptamine, 5-HT)的前体合成。研究表明,茶多酚能够作为益生元成分重塑肠道微生态,通过选择性富集乳杆菌和双歧杆菌等有益菌并强化肠道屏障,抑制全身性炎症及LPS入血;同时,肠道菌群将茶多酚代谢为可穿过血脑屏障的生物活性小分子(如酚酸和缬草内酯),直接或通过迷走神经间接上调中枢神经系统内5-HT与GABA等抑制性神经递质的水平,从而缩短睡眠潜伏期并提升非快动眼睡眠(non-rapid eye movement sleep, NREM)的质量[45]。SCFAs刺激肠道L细胞分泌GLP-1,该信号通过迷走神经传入中枢,不仅调节食欲,还表现出显著的神经营养作用,增强突触可塑性及海马体中脑源性神经营养因子的表达[46]。
3.3 血管内皮保护:三甲胺氧化物(trimethylamine N-oxide,TMAO)抑制与脂质逆向转运
心血管疾病的防治是食药同源研究的重点之一,TMAO与多种心血管代谢疾病和全因死亡风险相关,同时会促进动脉粥样硬化。TMAO的主要膳食前体是左旋肉碱。左旋肉碱经肠道菌群代谢为γ-丁基甜菜碱(γ-butyrobetaine, γ-BB),随后生成三甲胺(trimethylamine, TMA),最终在肝脏中氧化为TMAO。研究证实,石榴苷能靶向抑制肠道菌群将左旋肉碱转化为TMA,从而在源头上阻断促动脉粥样硬化因子TMAO的生成;此外,石榴苷在抑制致病菌的同时能促进Bifidobacterium, Lactobacillus, A. muciniphila等益生菌的生长,进而通过调节肠道微生态稳态来降低心血管代谢风险[47]。木脂素在肠道内经特定菌群如拟杆菌属和普雷沃氏菌属转化生成具有类雌激素结构的Enterodiol和Enterolactone,这些代谢产物作为雌激素受体天然配体,能有效调节脂质代谢。同时,木脂素可增强抗氧化活性,缓解氧化应激,抑制促炎因子的产生,以保护血管内皮功能,并通过提升一氧化氮水平改善血管舒张[25]。食药同源植物中的多酚如槲皮素、白藜芦醇和芹菜素通过调节肾素-血管紧张素系统(renin-angiotensin system, RAS),诱导血管内皮细胞释放NO,有效降低外周血管阻力并改善血管顺应性。此外,这些多酚代谢产物还能激活内皮细胞中的Nrf2信号通路,增强抗氧化酶系表达,从而拮抗由高糖或高脂诱导的内皮氧化应激损伤[48]。
综上所述,食药同源植物多酚-肠道菌群轴通过复杂的全身性信号网络协同改善宿主健康:多酚不仅在肠腔内被微生物转化为活性代谢物,还通过调控肠屏障、激活内分泌激素、影响炎症与氧化应激途径等途径,将肠道微生态变化传递至肝脏、脑和血管系统。这样的微生态-代谢-信号级联调控,不仅有助于恢复能量代谢稳态、缓解肝脏脂肪沉积及炎症,还能改善神经功能、增强血管顺应性并抑制促粥样硬化代谢物的形成,从而构成一个整合全身代谢、免疫及器官稳态的系统性调控机制,为食药同源成分在代谢性疾病、神经退行性病变及心血管疾病中的干预提供了坚实的分子机制基础。
4 总结与展望
食药同源植物多酚与肠道菌群的双向调控机制,是传统医学智慧与现代生命科学交汇的前沿领域,其本质体现为一种高度进化的跨界信号通讯与物质转化网络。一方面,肠道菌群通过去糖基化、环裂解及还原反应,将生物利用度较低的多酚母体转化为高活性且易吸收的次级代谢产物;另一方面,多酚通过类益生元效应选择性重塑菌群结构,进而调控短链脂肪酸、胆汁酸及内毒素水平,经由“肠-肝-脑”等多器官轴维护宿主的代谢与免疫稳态。这种双向互作为慢性疾病的营养干预提供了全新的理论视角。
然而,该领域仍面临诸多科学挑战,包括代谢表型的个体显著异质性、复方成分协同机制的复杂性以及体内动态转化路径追踪的困难等。未来研究应致力于深入挖掘特定功能菌株及其代谢酶谱,系统解析“多酚-菌群-宿主”的深层信号通路。通过构建基于代谢表型的精准营养干预模型,并开发靶向菌群的新型食药同源功能产品,有望实现传统药食文化与现代精准医学的深度融合,为全球大健康产业提供有力的科学支撑。
[1] Jakobek L, Blesso C. Beneficial effects of phenolic compounds: Native phenolic compounds vs metabolites and catabolites[J]. Critical Reviews in Food Science and Nutrition, 2024, 64(25):9113-9131.
[2] Liu Y C, Deng J J, Zhao T, et al. Bioavailability and mechanisms of dietary polyphenols affected by non-thermal processing technology in fruits and vegetables[J]. Current Research in Food Science, 2024, 8:100715.
[3] Torres-Fuentes C, Schellekens H, Cryan J F, et al. Interplay between (poly)phenols, gut microbiota, and biological rhythms: Outlook for a new paradigm in brain health[J]. Critical Reviews in Food Science and Nutrition, 2026, 66(10):1937-1952.
[4] Espín J C, Jarrín-Orozco M P, Osuna-Galisteo L, et al. Perspective on the coevolutionary role of host and gut microbiota in polyphenol health effects: Metabotypes and precision health[J]. Molecular Nutrition &Food Research, 2024, 68(22): e2400526.
[5] Jia Y Q, Liu Y N, Wu Y Y, et al. The regulation of glucose and lipid metabolism through the interaction of dietary polyphenols and polysaccharides via the gut microbiota pathway[J]. Food &Function, 2024, 15(16):8200-8216.
[6] Nazzaro F, Coppola F, Fratianni F, et al. Polyphenols bioactive metabolites, and their anti-biofilm and neuroprotective potential[J]. Foods, 2025, 14(22):3976.
[7] Chen J, Deng Y, Long S Y, et al. Metabolic flux and catabolic kinetics of prebiotic-like dietary polyphenol phlorizin in association with gut microbiota in vitro[J]. Food Chemistry, 2024, 440:138240.
[8] Sun S Q, Liu Z Y, Lin M X, et al. Polyphenols in health and food processing: Antibacterial, anti-inflammatory, and antioxidant insights[J]. Frontiers in Nutrition, 2024, 11:1456730.
[9] Wu J X, Shen S H, Cheng H, et al. RG-I pectic polysaccharides and hesperidin synergistically modulate gut microbiota: An in vitro study targeting the proportional relationship[J]. Food Chemistry, 2025, 462:141010.
[10] Liu S Y, Loo Y T, Li Z Z, et al. Alginate-inulin-chitosan based microspheres alter metabolic fate of encapsulated quercetin, promote short chain fatty acid production, and modulate pig gut microbiota[J]. Food Chemistry, 2023, 418:135802.
[11] Vollmer M, Esders S, Farquharson F M, et al. Mutual interaction of phenolic compounds and microbiota: Metabolism of complex phenolic apigenin-C- and kaempferol-O-derivatives by human fecal samples[J]. Journal of Agricultural and Food Chemistry, 2018, 66(2)485-497
[12] Wang B L, Tang X, Mao B Y, et al. Effects of in vitro fecal fermentation on the metabolism and antioxidant properties of cyanidin-3-O-glucoside[J]. Food Chemistry, 2024, 431:137132.
[13] Luo F D, Chen J, Liang S J, et al. In vivo investigation on the effect of gut microbiota on the distribution and biotransformation of curcumin[J]. Journal of Agricultural and Food Chemistry, 2025, 73(41):26206-26219.
[14] Zhang S X, Hu F F, Chen H, et al. Gut bacteria and the host synergies promote resveratrol metabolism and induce tolerance in ALD mice[J]. npj Biofilms and Microbiomes, 2025, 11:132.
[15] Keranmu A, Pan L B, Fu J, et al. Biotransformation of liquiritigenin into characteristic metabolites by the gut microbiota[J]. Molecules, 2022, 27(10):3057.
[16] Sun W L, Yang J W, Dou H Y, et al. Anti-inflammatory effect of luteolin is related to the changes in the gut microbiota and contributes to preventing the progression from simple steatosis to nonalcoholic steatohepatitis[J]. Bioorganic Chemistry, 2021, 112:104966.
[17] Wang Z C, Yu Y Y, Shao W J, et al. Puerarin ameliorates alcoholic liver disease by regulating intestinal flora and MAPK/Nrf2 signalling pathways[J]. Ecotoxicology and Environmental Safety, 2026, 309:119699.
[18] Chen P, Sun J W, Liang Z Q, et al. The bioavailability of soy isoflavones in vitro and their effects on gut microbiota in the simulator of the human intestinal microbial ecosystem[J]. Food Research International, 2022, 152:110868.
[19] Yang F, Chen C, Ni D R, et al. Effects of fermentation on bioactivity and the composition of polyphenols contained in polyphenol-rich foods: A review[J]. Foods, 2023, 12(17):3315.
[20] Chen L, Cao H, Huang Q, et al. Absorption, metabolism and bioavailability of flavonoids: A review[J]. Critical Reviews in Food Science and Nutrition, 2022, 62(28):7730-7742.
[21] Taborda A, Frazão T, Rodrigues M V, et al. Mechanistic insights into glycoside 3-oxidases involved in C-glycoside metabolism in soil microorganisms[J]. Nature Communications, 2023, 14:7289.
[22] Zahn L E, Gannon P M, Rajakovich L J. Iron-sulfur cluster-dependent enzymes and molybdenum-dependent reductases in the anaerobic metabolism of human gut microbes[J]. Metallomics, 2024, 16(11): mfae049.
[23] Marín L, Miguélez E M, Villar C J, et al. Bioavailability of dietary polyphenols and gut microbiota metabolism: Antimicrobial properties[J]. BioMed Research International, 2015, 2015:905215.
[24] Dong X Y, Bae M, Le C, et al. Enantiocomplementary gut bacterial enzymes metabolize dietary polyphenols[J]. Journal of the American Chemical Society, 2025, 147(9)7231-7244
[25] Senizza A, Rocchetti G, Mosele J I, et al. Lignans and gut microbiota: An interplay revealing potential health implications[J]. Molecules, 2020, 25(23):5709.
[26] Stevens J F, Maier C S. The chemistry of gut microbial metabolism of polyphenols[J]. Phytochemistry Reviews, 2016, 15(3):425-444.
[27] Iglesias-Aguirre C E, García-Villalba R, Beltrán D, et al. Gut bacteria involved in ellagic acid metabolism to yield human urolithin metabotypes revealed[J]. Journal of Agricultural and Food Chemistry, 2023, 71(9)4029-4035
[28] Zhang Y H, Zhang B W, Liu X X, et al. Gastrointestinal distribution and in vitro-microbial biotransformation of chlorogenic acid[J]. Food Science and Human Wellness, 2025, 14(7):9250312.
[29] Lu S Y, Cheng D Y, Yao H, et al. Cascade microbial metabolism of ferulic acid in vitro fermented by the human fecal inoculum[J]. Journal of Agricultural and Food Chemistry, 2024, 72(17)9807-9817
[30] Ding X D, Wang J, Zhu W Y. The hydrogenation metabolism process of rosmarinic acid by microbial enzymes in chickens[J]. Journal of the Science of Food and Agriculture, 2025, 105(13):7340-7349.
[31] Mao S F, Ren Y M, Chen S G, et al. Healthy benefits of proanthocyanidins metabolites and its interactions with microbiota[J]. Food Reviews International, 2025, 41(6):1631-1652.
[32] Liu L Y, Zhao F, Han D D, et al. Liquiritigenin ameliorates DSS-induced ulcerative colitis by improving intestinal barrier function, reducing endoplasmic reticulum stress and modulating gut microbiota[J]. Journal of Functional Foods, 2024, 122:106541.
[33] Roopchand D E, Carmody R N, Kuhn P, et al. Dietary polyphenols promote growth of the gut bacterium Akkermansia muciniphila and attenuate high-fat diet-induced metabolic syndrome[J]. Diabetes, 2015, 64(8):2847-2858.
[34] Malek S, Moslemi M. Application of natural preservatives in functional foods[J]. Food Materials Research, 2025, 5: e019.
[35] Nain Z, Mansur F J, Syed S B, et al. Inhibition of biofilm formation, quorum sensing and other virulence factors in Pseudomonas aeruginosa by polyphenols of Gynura procumbens leaves[J]. Journal of Biomolecular Structure &Dynamics, 2022, 40(12):5357-5371.
[36] Scarano A, Laddomada B, Blando F, et al. The chelating ability of plant polyphenols can affect iron homeostasis and gut microbiota[J]. Antioxidants, 2023, 12(3):630.
[37] Beam A, Clinger E, Hao L. Effect of diet and dietary components on the composition of the gut microbiota[J]. Nutrients, 2021, 13(8):2795.
[38] Gasaly N, Hermoso M A, Gotteland M. Butyrate and the fine-tuning of colonic homeostasis: Implication for inflammatory bowel diseases[J]. International Journal of Molecular Sciences, 2021, 22(6):3061.
[39] Zafari R, Goudarzi N, Kamroo A, et al. The effects of polyphenols on gut microbial metabolites and composition in neurodegenerative diseases: A systematic review[J]. Nutrition &Metabolism, 2025, 22(1):142.
[40] Fu J J, Zhao Z H, Zhou D, et al. Therapeutic potential of polyphenols in targeting Th17/Treg balance for intestinal barrier maintenance[J]. Food Science &Nutrition, 2025, 13(6): e70400.
[41] Zhang Q Q, Deng S X, Sun Y Y, et al. Chlorogenic acid improves DSS-induced colitis in mice by regulating the gut microbiota[J]. Food &Function, 2026, 17(3):1645-1659.
[42] Zhuge A X, Li S J, Han S Y, et al. Akkermansia muciniphila-derived acetate activates the hepatic AMPK/SIRT1/PGC-1α axis to alleviate ferroptosis in metabolic-associated fatty liver disease[J]. Acta Pharmaceutica Sinica B, 2025, 15(1):151-167.
[43] Tveter K M, Mezhibovsky E, Wu Y, et al. Bile acid metabolism and signaling: Emerging pharmacological targets of dietary polyphenols[J]. Pharmacology &Therapeutics, 2023, 248:108457.
[44] Zhang Q, Zhang W, Yuan X Y, et al. Urolithin a in central nervous system disorders: Therapeutic applications and challenges[J]. Biomedicines, 2025, 13(7):1553.
[45] Hu B, Chen Y L, Gong X R, et al. Mechanism of tea polyphenols improving sleep by regulating neurotransmitters through the gut microbiota-brain axis[J]. The Journal of Nutritional Biochemistry, 2026, 151:110272.
[46] Longo S, Rizza S, Federici M. Microbiota-gut-brain axis: Relationships among the vagus nerve, gut microbiota, obesity, and diabetes[J]. Acta Diabetologica, 2023, 60(8):1007-1017.
[47] Haarhuis J E, Gamal El-Din M I, Lamprinaki D, et al. Punicalagin is the key pomegranate polyphenol inhibiting gut microbial trimethylamine (TMA) production from L-carnitine in an in vitro human colon model[J]. Food &Function, 2026, 17(4):1827-1840.
[48] Situmorang P C, Wibowo S, Tanjung M, et al. Molecular mechanism of phytochemical compounds in mitigating hypertension[J]. Phytomedicine Plus, 2025, 5(3):100812.