乳酸菌是一类能够发酵碳水化合物生成乳酸的革兰氏阳性菌,具备较强的耐酸和产酸能力,通过黏附、竞争排斥等方式,抑制腐败菌和致病微生物的生长,增强免疫功能、改善食品风味[1],但在功能食品、发酵制品应用中会受到外部条件影响,导致存活率大幅下降。
生物膜是微生物附着于载体表面并通过分泌胞外聚合物形成的三维结构群落,在极端环境下为细菌提供物理屏障和生理保护。研究发现,生物膜通过群体感应调控基因表达,使得内部细胞呈现表型异质性,进入低代谢或休眠状态,屏蔽外界胁迫的同时,增加生物膜的产量,提高在极端环境下的耐受性与存活能力[2]。生物膜的形成被视为细菌在自然或工业环境中应对复杂胁迫条件的有效生存机制[3]。
已有研究表明,乳酸菌在宿主体内或食品基质表面主要以生物膜态定植[4],与游离态细胞相比,生物膜能够通过胞外多糖(exopolysaccharides,EPS)基质实现更强的抗逆性、代谢活性以及与宿主的互作能力,从而显著提升益生菌的存活率和功能表达。但外部因素容易对生物膜的形成与成熟、初始附着以及结构构建等产生影响。因此本文对生物膜的形成以及影响乳酸菌生物膜产生的因素进行阐述,有助于提升菌体在食品加工过程中的抗逆性与稳定性,为乳酸菌生物膜在递送、功能食品开发与加工等方面提供了依据与参考。
1 生物膜的形成
生物膜是由菌体及其分泌的蛋白质、DNA和多糖共同构成,为微生物提供物理保护的同时,通过化学缓冲、信号传导和基因交换,构建了一个稳定的微环境,促进了种内和种间的信息交流[5]。它是抵御酸胁迫、高质量浓度胆汁盐等恶劣条件的关键适应机制[6]。
生物膜的形成是一个动态发展过程,包括黏附、形成、成熟、老化脱落和重新附着5个阶段(图1)。第一阶段:初始附着/再附着。游离的乳酸菌通过范德华力和静电作用力与载体表面发生可逆性黏附,仅有少量胞外聚合物包裹菌体,黏附的细菌仍可恢复浮游状态[4,7]。第二阶段:生物膜形成。乳酸菌在载体表面稳定附着后,大量繁殖同时形成微型菌落,多层结构初步形成。第三阶段与第四阶段为生物膜的成熟期。当乳酸菌密度达到阈值时,通过AI-2/LuxS等群体感应系统释放信号分子,靶向激活下游转录网络,上调EPS合成酶、表面蛋白及eDNA释放等相关基因,促进EPS、基质蛋白和DNA等大分子大量累积,组装成致密、三维且高度结构化的成熟生物膜[8]。第五阶段:老化脱落,活跃增殖下调控转运相关蛋白的表达,促使已形成的生物膜部分脱落,同时,细菌继续黏附并迁移至新的基质表面,重新建立生物膜结构,实现再次定植[9]。
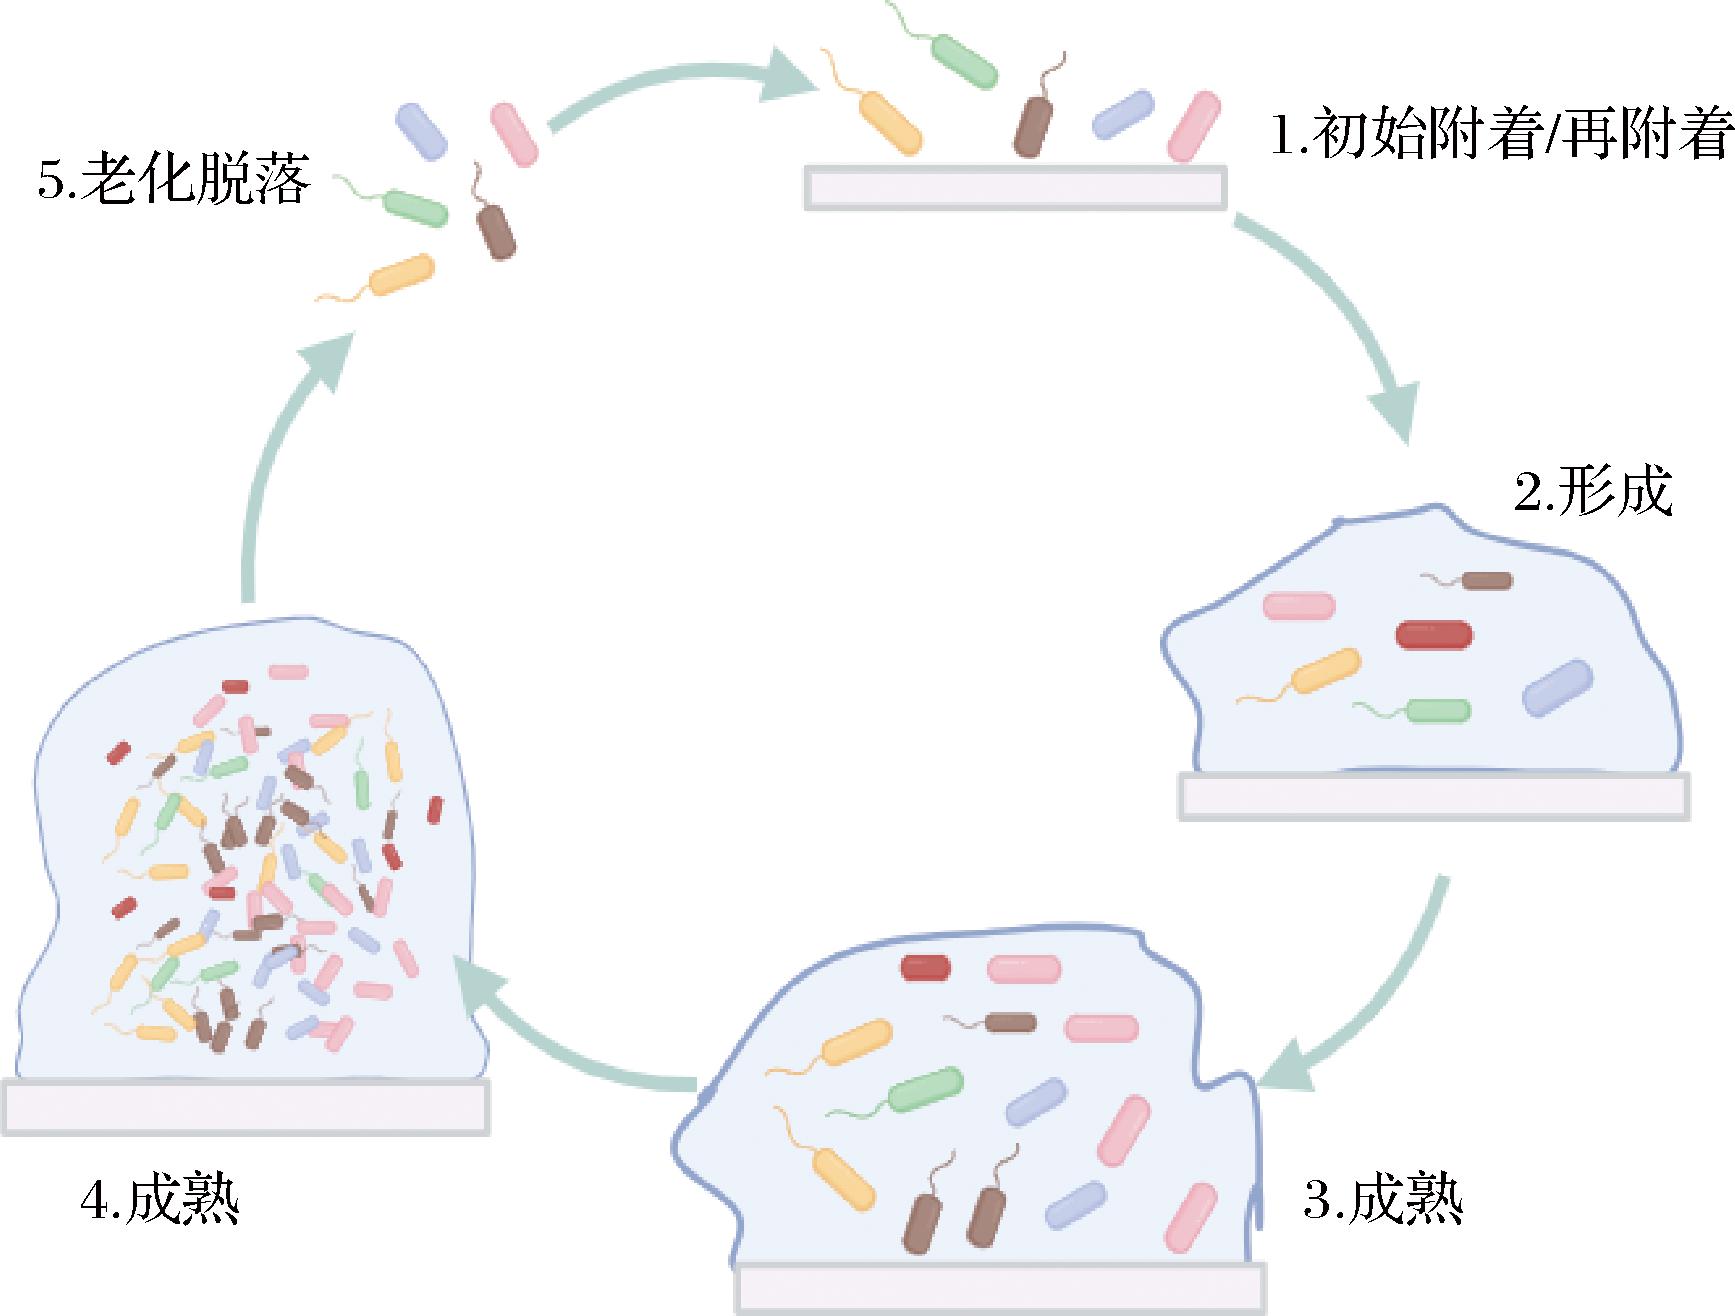
图1 乳酸菌生物膜形成的动态过程示意图
Fig.1 Schematic diagram of the transition process in lactic acid bacteria biofilm formation
2 影响生物膜形成的因素
2.1 环境因素
2.1.1 营养物质
影响生物膜形成的因素如图2所示。适度的营养限制可作为胁迫信号,诱导生物膜形成,但长期营养匮乏则会阻碍生物膜的进一步发育与成熟[10]。研究发现,与稀释10倍的MRS培养基、乳杆菌肉汤(AOAC)培养基相比,EPS在稀释10倍的改良胰蛋白胨大豆肉汤(modified tryptic soy broth,mTSB)培养基中产量最高,生物膜密度最大[11]。其中蔗糖的添加显著促进了植物乳植杆菌生物膜的形成[12],改变EPS的单糖组成,增加葡萄糖和半乳糖的比例,提高对冷冻干燥和25 g/L胆盐胁迫条件下抵抗力[13]。
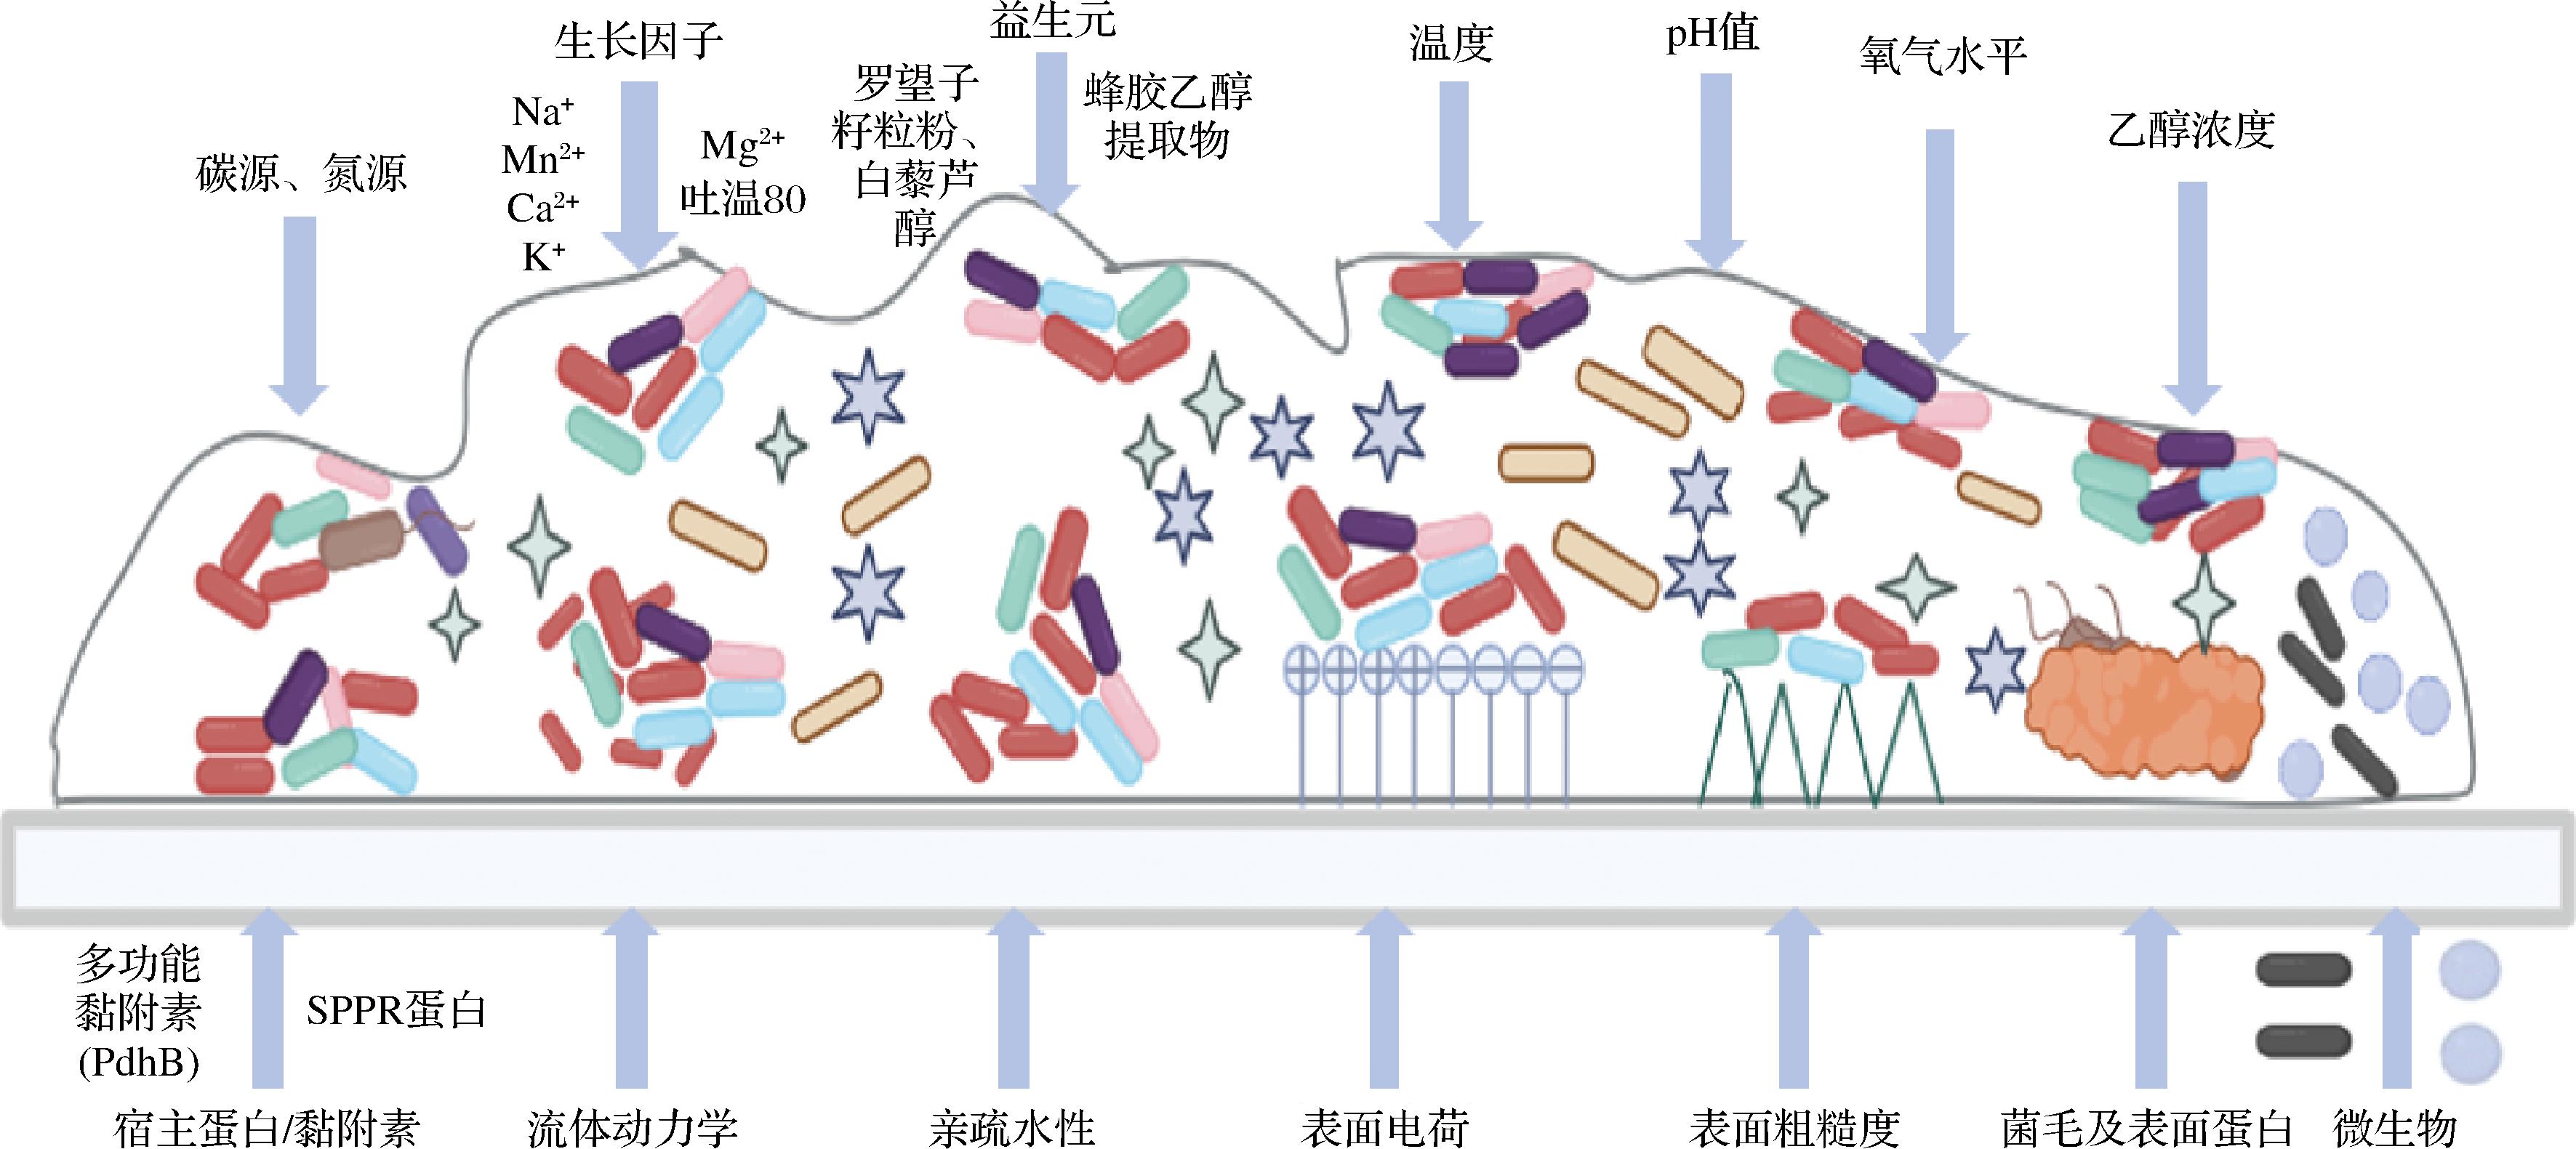
图2 影响生物膜形成因素
Fig.2 Factors affecting biofilm formation
注:PdhB-丙酮酸脱氢酶E1 β亚基黏附蛋白;SRRP-富含丝氨酸重复蛋白。
氮是乳酸菌生长与代谢的必需营养素,通过调控EPS合成,帮助细菌黏附在不同表面,作为营养储存库为菌体代谢提供能量[14]。研究发现,从工业酸奶发酵剂培养物中分离而来的嗜热链球菌LY03,在初始复合氮浓度较高时,高分子质量和低分子质量的EPS产量增加,影响EPS生产动力学[15]。
2.1.2 生长因子
金属离子Ca2+、K+、Na+、Mn2+、Mg2+等与阴离子产生静电相互作用,稳定细菌脂多糖并有助于细菌的聚集和黏附。
Na+在低浓度区间通过调节渗透压平衡,激活生物膜形成有关基因表达,弥补膜结构不稳定的缺陷,促进乳酸菌生物膜的生成[16]。例如植物乳植杆菌的耐盐策略由“相容性溶质缓冲系统”与“糖酵解通量重编程”双轴驱动:一方面,NaCl浓度升高触发细胞快速富集甘氨酸、海藻糖等兼容剂,在重建渗透平衡的同时重塑中心碳代谢与信号网络,间接调控膜生成、酶分泌和生物膜发育;另一方面,Cl-刺激通过转录放大PFK、FBA、PGK、LDH等节点基因,显著增加糖酵解通量及蛋白酶产量[17]。
低浓度Mn2+可促进菌体分泌更多的EPS,24 h内,AI-2/LuxS信号通路与Mn2+转运系统、脂肪酸生物合成途径,共同促进EPS和脂质合成以及环二鸟苷酸(cyclic diguanosine monophosphate, c-di-GMP)分泌,降低细胞膜流动性,促进菌体由浮游状态向生物膜状态的转变,生物膜显著增加[18]。
Shokeen等[19]研究发现,补充5 mmol/L CaCl2触发口腔微生物群落中变形链球菌生物膜中eDNA的释放。Ca2+能够在带负电荷的细菌细胞和EPS中,产生离子桥并为细菌细胞包膜提供结构完整性[20]。
Mg2+作为EPS合成酶的辅因子,对生物膜存在浓度依赖性的双向调控。低浓度(≤10 mmol/L)时可增强细胞表面电荷中和,促进细胞黏附和初始EPS分泌;高浓度(≥30 mmol/L)时,Mg2+与EPS中的羧基、磷酸基形成过多配位桥,生物膜结构过度交联、通道收缩,抑制生物膜成熟[21]。
K+刺激植物乳植杆菌LIP-1上游基因LuxS、下游cysE基因的上调,群体感应信号分子AI-2数量的增多,增强信息交换,有效阻断大分子物质进入,减少外部环境的破坏[22]。
吐温-80是一种非离子表面活性剂,可降低培养基中的颗粒大小并渗透细胞膜,导致EPS结构松散,堵塞生物膜内部的传质通道,抑制营养物质的扩散。研究表明,MRS培养基中添加吐温-80会抑制4株乳酸菌(包括罗伊氏粘液乳杆菌、植物乳植杆菌等)生物膜的形成,且该作用与葡萄糖共同存在时更为显著[23]。
2.1.3 益生元
多种来源于植物的活性成分围绕“表面电荷疏水平衡群体感应”这一轴线,以“剂量应变双重依赖”的方式精准、双向调控生物膜。具体表现为:在培养基中添加25~50 g/L罗望子籽粉时呈剂量依赖效应,显著促进动物双歧杆菌的增殖与生物膜的形成。衰减全反射傅里叶变换红外光谱-主成分分析显示,生物膜的酰胺A带增强、羟基信号减弱、蛋白分泌增多、EPS结构被重塑,从而提升益生菌在肠道中的定植能力。低浓度白藜芦醇(≤50 μg/mL)可作为副干酪乳酪杆菌ATCC334等特定菌株的生物膜诱导剂,改变表面酸碱性,降低负电荷绝对值,增强细胞表面疏水性,促进细胞自聚、黏附及后续生物膜的发育,在肠道环境中选择性地强化乳酸菌而抑制其他菌种,进而重塑菌群结构[24]。富含黄酮和多酚的蜂胶乙醇提取物表现出“低促高抑”的双重活性:在亚抑菌浓度(≤400 μg/mL)下刺激细胞自聚和微菌落形成,促进生物膜的生成;在800 μg/mL时,凭借其抗菌作用、干扰群体感应以及与胞外聚合物的相互作用,促进益生菌生物膜的形成,抑制致病菌生物膜的形成,起到精准调控作用[25-26]。
2.1.4 温度影响
益生菌生物膜的形成能力呈现显著的温度依赖性,不同菌株对温度变化的响应模式存在实质性差异,特异性源于长期进化过程中对生态位温度条件的适应性优化[12]。谢丽斯等[27]从腐败食品中分离乳酸菌,其中4种在42 ℃下形成大量生物膜,2种在37 ℃下形成大量生物膜。温度升高会导致生物膜中活细胞数量下降,生物膜总量增加,对细胞代谢和生物膜结构产生影响[28]。
2.1.5 pH值影响
被膜态乳酸菌普遍比浮游态具有更高的酸碱耐受力:初始pH>5时,植物乳植杆菌Y42的生物膜产量无显著波动,pH值为5.0~6.0时,多数菌株的浮游生长显著优于生物膜态生长,提示弱酸环境对该菌膜形成影响有限[12]。酸胁迫导致酸敏感应激蛋白变性、膜结构受损及菌体拮抗性增强,在低pH值条件下,阴离子作为磷酸基团与EPS结合,EPS层限制外源性酸进入细菌细胞[29]。
2.1.6 氧气水平影响
EPS合成受到温度、pH值与O2水平三重物理信号协同调控。当CO2分压升高或氧化应激时,菌体通过提高EPS产量,在细胞表面形成致密屏障,限制有毒分子内流;外源添加EPS使肠系膜乳杆菌在H2O2胁迫下的存活率提升10倍,显著促进乳杆菌、双歧杆菌等专性厌氧菌的有氧生长[30]。功能化学解析显示,EPS侧链的羟基与羧基可捕获自由基,阻断脂质-蛋白-核酸的级联氧化。然而,植物乳植杆菌过氧化氢酶因缺失血红素辅基而普遍失活,超氧化物歧化酶与NADH过氧化物酶虽可检出,但活性不足[29]。共培养实验进一步表明,枯草芽孢杆菌通过快速消耗H2O2将O2水平降至0.2 mmol/L以下,使植物乳植杆菌的存活率回升3.8倍[31],“EPS物理屏蔽”与“交叉喂养-活性氧解毒”构成乳酸菌在肠道中抵御氧化胁迫、稳定生物膜的互补生态策略。
2.1.7 宿主蛋白/黏附素
植物乳植杆菌来源的多功能黏附素(PdhB)具备结合胶原蛋白与纤连蛋白的双重能力,通过介导生物膜形成并占据宿主细胞外基质位点,阻断病原菌定植,为开发具有抗炎与免疫调节功能的益生菌提供了新的分子靶点。罗伊氏粘液乳杆菌表面展现出β-螺旋折叠结构,通过pH依赖性机制发挥黏附作用[32]。另一研究通过原子力显微镜验证SRRP的碱性结合(basic region,BR)结构域特异性结合DNA,源自自溶菌体的DNA是生物膜的重要组成成分,具有识别多糖和糖蛋白的能力,可构建供活菌附着的胞外网络,在不同pH值条件下与上皮细胞及膳食成分结合,推测SRRP-BR的DNA结合能力促进了啮齿动物菌株以及通过生物信息学预测携带SRRP的其他乳杆菌属在小鼠前胃中形成生物膜的能力[33]。
2.1.8 乙醇浓度影响
乙醇对乳酸菌生物膜耐受性的影响呈现典型的“胁迫诱导适应性增强”效应。研究表明,在亚致死浓度乙醇环境中会显著促进EPS的合成与分泌,增厚生物膜的物理屏障,限制乙醇分子的渗透扩散,在膜内部创造一个相对缓和的微环境[34]。乙醇的主要作用靶点是细胞膜的脂质双分子层。为维持膜在乙醇环境下的流动性与完整性,处于生物膜状态的菌群会显著提高膜脂中不饱和脂肪酸和长链脂肪酸的比例。乙醇胁迫也会激活生物膜内菌群的全局性应激保护系统。蛋白质组学分析表明,关键的热激蛋白及氧化应激相关蛋白(如过氧化氢酶)的表达在生物膜状态下被持续上调。这一响应能够清除次级活性氧自由基,有效抵御乙醇引发的蛋白质功能损伤与氧化胁迫。乙醇胁迫驱动了乳酸菌生物膜在物理屏障、分子防御及细胞结构等多个维度的系统性适应[35]。
2.2 物理因素
2.2.1 流体动力学
流体动力学诱导了生物膜的空间结构,影响三维生物膜的发育,流体通过提升营养供给、产生剪切力、改变细胞附着位置以及调节基质组成,显著影响植物乳植杆菌生物膜的形成与特性[4]。不同菌株对流动的响应存在显著差异:植物乳植杆菌CIP104448对流速敏感,生物膜量和细胞数均显著提升;植物乳植杆菌WCFS1受生物膜量影响不大,但仍受流动诱导的壁面附着和基质重构影响[36]。Rashtchi等[37]使用BioFlux 1000Z微流控平台,模拟胃肠道剪切应力,发现发酵粘液乳杆菌PL29能在黏膜涂层通道中形成稳固的生物膜,流动条件显著提升黏附率、抗酸、抗胆汁能力。
2.3 黏附介质表面性质
细菌黏附是生物膜形成的初步步骤。附着是由带负电的细菌膜和表面引起的排斥力,通过细菌膜上鞭毛和菌毛的存在实现。涉及结构支持的附着阶段称为可逆附着。结合是可逆的,离开表面的细菌会恢复其浮游生活方式。留在表面的细菌经历不可逆附着,这一步骤对于生物膜态的形成至关重要[12]。
与浮游形式相比,生物膜形式表现出表面特性增强,包括自聚集能力、疏水性、酸碱电荷和黏附性。对材料表面理化改性可以提高乳酸菌的附着力。细胞表面之间或细胞表面与物体表面之间的疏水性和静电相互作用,在乳杆菌的非特异性黏附过程中起主导作用[38]。生物膜的形成促进了细菌在多种非生物表面的黏附。
2.3.1 亲疏水性和表面电荷
调节表面终端基团的电荷与亲疏水性,可实现对乳酸菌黏附强度、膜层厚度、组成以及抗冲刷能力的精准控制[39]。自组装单层实现介质表面功能化,终端基团决定初始黏附强度,NH3+正电基团通过静电吸引增加细胞表面带负电的细胞壁成分(如磷脂、壁酸),提升了细胞黏附力,使得正电荷表面生物膜的多糖含量最高且增长速率最快。—CH3的疏水性降低了细胞表面的亲水相互作用,导致黏附和后续生物膜的累积受限;—OH虽亲水但缺乏电荷吸引,黏附力居中[40]。
2.3.2 表面粗糙度
粗糙表面可以增加细菌与材料之间的有效接触面积,提供更多的物理“锚点”,促进细菌的机械嵌合和稳定黏附。清酒广布乳杆菌CRL1862在不锈钢表面表现出强大的附着能力,10 ℃培养6 d后,其生物膜形成量达到最大。通过扫描电子显微镜和荧光显微镜观察发现,均匀、致密的生物膜层几乎完全覆盖材料表面。这种均匀分布的结构有利于菌体间的通讯和协同作用,从而增强其在复杂环境中的生存能力和代谢活性[41]。
2.4 微生物形态及其作用
2.4.1 菌毛及表面蛋白
菌毛通过长而柔软的纤维,与其他表面蛋白相互作用产生多点黏附,使细胞之间形成网络状聚集,进而产生立体、异质的生物膜结构(出现气泡、突起等特征),整体膜刚性降低,使生物膜在较高剪切力下能够变形而不破裂,提升生物膜的持久性[42]。
2.4.2 微生物相互作用
共培养促进EPS产生的现象在乳酸菌研究中已有广泛报道。植物乳植杆菌LP-52与发酵粘液乳杆菌LF-56在同培养体系中能够相互促进生长,进而形成一种结构稳定、功能独特的双菌种生物膜。该生物膜在EPS组成、代谢活性、整体生物量、覆盖率与平均厚度等特征上均优于单菌种膜,共生作用上调嘌呤、嘧啶代谢通路,氨基酸代谢(尤其是丙氨酸、天冬氨酸和谷氨酸)以及核黄素代谢显著增强;糖酵解、三羧酸循环和转运蛋白相关基因也呈上调趋势,双菌种共培养能够提升能量代谢效率、增强对环境压力的适应能力,并赋予生物膜额外的健康功能[43]。
研究发现马乳酒样乳杆菌马乳酒样亚种JCM 6985与酿酒酵母IFO 0216共培养时,EPS产量显著提升;鼠李糖乳酪杆菌RW-9595M在共培养条件下EPS基因表达上升39%~42%;副干酪乳酪杆菌与酿酒酵母共培养也导致参与EPS合成的聚异丙烯基糖基磷酸转移酶基因过表达[29]。这些研究表明,细菌与酵母的直接接触能够通过降低乳酸积累、激活应激响应等机制驱动EPS合成的增强,形成更厚、更均匀且更具抗消化能力的双物种生物膜,且可以通过调节核心代谢通路,提升细胞的能量供给和抗逆性。
表1系统解析了乳酸菌生物膜的形成是受多因素协同调控的复杂过程,生物膜的结构与功能受到环境因素、介质表面性质及微生物自身特性的综合影响,为实现其在益生菌制剂、功能食品与肠道定植中的精准应用提供理论支撑。
表1 乳酸菌生物膜形成的矛盾冲突及研究空白
Table 1 Contradictions and research gaps in lactic acid bacteria biofilm formation

影响因素增强生物膜形成的证据矛盾发现与机制冲突研究空白与未来方向营养物质碳源:一定量的蔗糖显著促进植物乳植杆菌生物膜形成,改变EPS单糖组成,提升抗逆性[12]氮源:高初始复合氮浓度提升嗜热链球菌LY03的EPS产量与分子质量多样性[15]持续低营养水平抑制生物膜成熟[10]。不同碳源对不同菌株的成膜效应差异巨大,其特异性调控机制不明,可能与环腺苷酸(cyclic adenosine monophosphate, cAMP)-环腺苷酸受体蛋白(cAMP re-ceptor protein, CRP)等全局调控网络有关,但具体路径未完全解析对“营养阈值”(最优成膜窗口)的系统定量研究生长因子(金属离子)Na+(低浓度):调节渗透压,激活成膜基因表达[16]Mn2+(低浓度):通过AI-2/LuxS和脂肪酸合成途径促进EPS与c-di-GMP分泌,诱导浮游态向生物膜态转变[18]Ca2+:通过离子桥稳定生物膜结构,提供完整性[19-20]K+:上调LuxS基因,增加AI-2信号分子,增强生物膜形成与抗扩散性[22]金属离子通过静电桥接稳定EPS,过量会导致基质过度致密,阻碍物质扩散金属离子共存时的协同/拮抗效应研究匮乏;浓度与生物膜三维结构、功能关系的预测模型缺失益生元/植物活性成分罗望子籽粒粉(25~50 g/L):剂量依赖性地促进动物双歧杆菌生物膜形成,重塑EPS结构[24]白藜芦醇(低浓度):提升表面疏水性,促进副干酪乳杆菌黏附与成膜[24]蜂胶提取物(低浓度):刺激细胞自聚和微菌落形成[25-26]多数活性成分呈现“低促高抑”[25-26]。同一成分对不同菌株甚至同一菌株不同生长阶段的调控方向可能相反,其作用靶点(表面电荷、群体感应)与剂量效应机制不清对益生元/植物活性成分-菌株特异性互作的高通量筛选与机制解析温度部分乳酸菌在42 ℃/37 ℃下生物膜形成量最大[27]温度升高可能导致生物膜总量增加,但活细胞数量下降[28]。不同菌株的最适成膜温度差异显著,源于其对原生生态位的进化适应,但其背后的分子基础(如热休克蛋白、膜流动性调节)研究不足温度与其他环境因素(如pH值、营养)耦合控生物膜形成的机制研究不足pH值生物膜态乳酸菌比浮游态具有更高的酸碱耐受力。EPS层能限制外源性酸进入细胞[29]在pH值5.0~6.0范围内,某些菌株的浮游生长优于生物膜态,提示弱酸环境对成膜影响有限或甚至抑制。胁迫诱导的EPS合成保护机制,与酸敏感蛋白变性、代谢抑制之间的平衡关系尚未明确缺乏对极端pH值条件下EPS化学结构变化与其屏障功能关联的系统研究O2水平EPS可作为“可诱导盾牌”,其羟基与羧基能捕获自由基,缓解氧化胁迫[30]与枯草芽孢杆菌共培养,后者消耗H2O2,显著提升植物乳植杆菌存活率[31]乳酸菌自身缺乏高效的活性氧清除酶系统(如过氧化氢酶)[29]。因此,其抗氧化严重依赖EPS的物理屏蔽和共生菌的“交叉喂养”,这种依赖关系的程度和可靠性因环境而异在有氧/微氧条件下生物膜形成的特异性调控网络尚未构建;活性氧解毒互作在复杂菌群中是否普遍存在有待验证表面性质正电荷表面(—NH3+):通过静电吸引带负电的菌体,增强初始黏附,促进生物膜生长[40]粗糙表面:增加接触面积,提供“锚点”,促进机械嵌合与稳定黏附[41]表面化学主要影响初始黏附,而生物膜的长期结构、厚度和功能更多由菌体代谢和群体感应主导,表面效应可能随时间减弱。亲水与疏水表面对不同菌株的黏附促进效果不一致如何精确调控生物膜三维结构与代谢功能的机制不明确;食品工业或肠道黏膜的仿生黏附材料设计研究不足
续表1
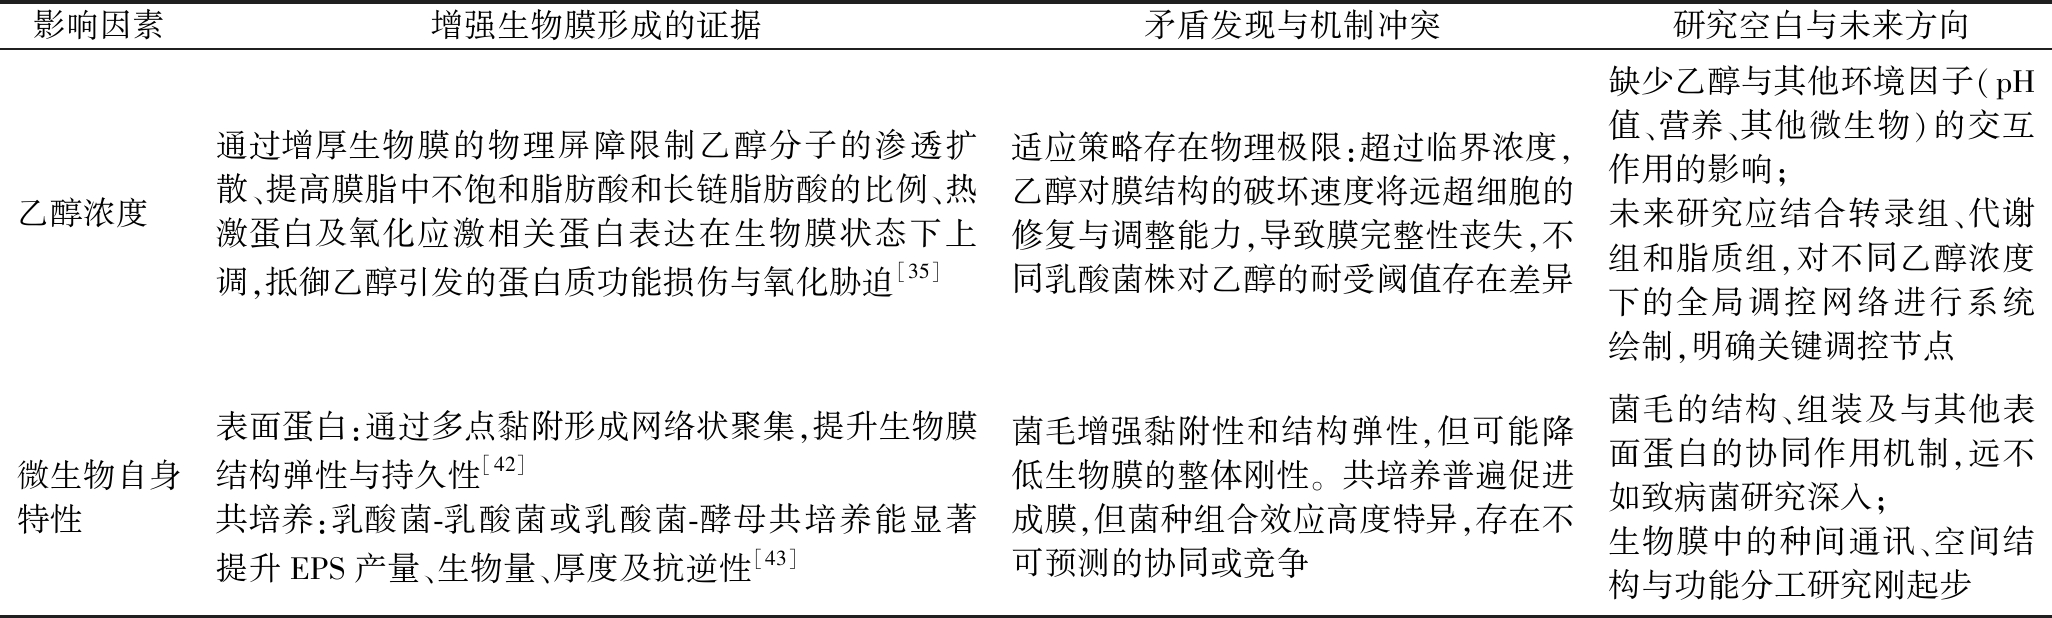
影响因素增强生物膜形成的证据矛盾发现与机制冲突研究空白与未来方向乙醇浓度通过增厚生物膜的物理屏障限制乙醇分子的渗透扩散、提高膜脂中不饱和脂肪酸和长链脂肪酸的比例、热激蛋白及氧化应激相关蛋白表达在生物膜状态下上调,抵御乙醇引发的蛋白质功能损伤与氧化胁迫[35]适应策略存在物理极限:超过临界浓度,乙醇对膜结构的破坏速度将远超细胞的修复与调整能力,导致膜完整性丧失,不同乳酸菌株对乙醇的耐受阈值存在差异缺少乙醇与其他环境因子(pH值、营养、其他微生物)的交互作用的影响; 未来研究应结合转录组、代谢组和脂质组,对不同乙醇浓度下的全局调控网络进行系统绘制,明确关键调控节点微生物自身特性表面蛋白:通过多点黏附形成网络状聚集,提升生物膜结构弹性与持久性[42]共培养:乳酸菌-乳酸菌或乳酸菌-酵母共培养能显著提升EPS产量、生物量、厚度及抗逆性[43]菌毛增强黏附性和结构弹性,但可能降低生物膜的整体刚性。共培养普遍促进成膜,但菌种组合效应高度特异,存在不可预测的协同或竞争菌毛的结构、组装及与其他表面蛋白的协同作用机制,远不如致病菌研究深入;生物膜中的种间通讯、空间结构与功能分工研究刚起步
3 生物膜形成机制
3.1 细胞黏附因子
细胞黏附因子在乳酸菌生物膜形成过程中发挥决定性调控作用,贯穿“初始黏附—微菌落聚集—生物膜成熟”全过程。LPXTG锚定蛋白、S层蛋白、脂磷壁酸(lipoteichoic acid,LTA)等表面分子协同介导菌体与基质的可逆性初始黏附,增强界面相互作用力,驱动黏附由可逆向不可逆转变,触发三维生物膜结构的构建与稳定[44]。
LPXTG锚定蛋白是乳酸菌通过Sortase A酶将蛋白共价锚定到肽聚糖上的关键因子,决定菌体对黏膜、胶原或纤维蛋白的黏附能力,激活第二信使网络,促进EPS合成[45]、生物膜结构更致密。中性pH值条件下表现酯酶活性,分解乳脂并释放多不饱和脂肪酸,改善菌株在肠道环境中的定植与生物膜稳固性[46]。在低pH值、高浓度胆盐等肠道应激条件下上调,进一步提升乳酸菌对不良环境的耐受性。
适量的金属离子(如Mn2+、Fe3+)通过与S层蛋白的Asp/Glu羧基配位,促进二维晶格自组装的构建、LTA的表面呈现,显著提升菌体的表面疏水性、表面电荷及自聚集能力,加速生物膜的成熟[47]。LTA为微生物相关分子模式,通过异二聚体激活宿主免疫,维持肠道免疫稳态[48]。D-丙氨酰化程度越高,LTA负电荷越强。Ca2+桥联的胞外聚合物沉积,显著增加生物膜基质厚度;糖链羟基与Mg2+/Ca2+形成离子桥,进一步增强静电吸附与细胞间聚集,为生物膜三维结构提供稳定的负电荷骨架。
3.2 群体感应(quorum sensing,QS)
3.2.1 AI-2/LuxS系统
AI-2/LuxS群体感应系统是乳酸菌调控生物膜形成的核心信号网络。系统发育与表型组学联合分析,LuxS在植物乳植杆菌、格氏乳杆菌等20余株乳酸菌中高度保守,编码的LuxS酶催化S-核糖同型半胱氨酸生成AI-2前体4,5-二羟基-2,3-戊二酮[49],在细胞外自发形成AI-2分子。受体LuxP/LuxQ-LuxU-LuxO-LuxR级联激活下游基因表达,调控黏附蛋白、EPS合成及应激耐受基因。研究发现,过表达LuxS可使AI-2活性提高2.1倍,伴随LacI、AraC、PadR等转录调节子丰度显著上升,激活膜蛋白与多糖合成酶表达。伴随EPS基因簇的上调和c-di-GMP水平升高,生物膜厚度较野生型增加65%,显著增强生物膜在酸、胆盐等不良环境下的形成[50]。AI-2信号不仅调节膜形成,调控细胞表面疏水性、酸耐受基因以及抗氧化酶,还提升乳酸菌在肠道中的定植能力和对致病菌的竞争排斥效应,形成“信号-基因-表型”三层次的协同网络[51]。
3.2.2 双组分信号转导系统
双组分信号转导系统通过感知外部刺激(如碳源、酸碱、金属离子等),调节特定响应调节子的活性,在层次分明且具备可塑性的网络中促进EPS合成、黏附蛋白表达以及应激基因的转录,乳酸菌能够在多变的环境条件下重塑生物膜的结构与功能,在肠道定植及抑制致病菌生物膜形成过程中发挥协同效应[52]。在罗伊氏粘液乳杆菌100-23中,bfrKRT与cemAKR两套双组分系统对碳源依赖的生物膜形成具有显著调控作用:缺失bfrK或cemA基因在蔗糖培养基中可显著增加膜厚度;删除cemK基因在葡萄糖培养基中可显著增强生物膜的形成。基因互作导致cemK和cemR表达水平改变[53],起到感知碳源信号、调节组氨酸激酶及其对应的响应调节子活性的作用。双组分系统能够精确控制EPS的合成及表面黏附因子的表达,在不同营养环境下驱动生物膜的形成与稳固。
3.2.3 寡肽类群体感应系统
寡肽类群体感应系统也是乳酸菌协调群体行为、适应环境的核心机制,嗜热链球菌中多种短疏水肽在群体密度达到阈值时被特异性转运回胞内,同步激活多个同源Rgg转录因子,启动合成EPS或蛋白组分的基因簇,诱导其他系统信号肽的表达,形成级联放大回路。协同激活的Rgg蛋白共同上调一系列生物膜相关功能基因的表达,包括编码初始黏附蛋白、EPS合成酶系以及菌体聚集因子的基因[54]。寡肽类群体感应系统通过紧密关联的信号感知与基因调控网络,同步启动多个生物膜相关基因的转录程序,全面协调从黏附、基质合成到最终分散的生物膜动态过程[55]。
3.3 第二信使分子
3.3.1 c-di-GMP、环二腺苷酸(cyclic diadenylate,c-di-AMP)
c-di-GMP与c-di-AMP作为细菌的第二信使,在乳酸菌生物膜的形成与调控中发挥互补且关键的作用。
c-di-GMP水平升高能够抑制细胞运动、促进EPS基因的转录,从而增强固体表面的黏附并驱动生物膜的成熟。嗜酸乳杆菌中有多套与c-di-GMP代谢相关的基因(如dgcA、pdeA、pdeB、nrnA等),协同调控EPS的合成与细胞间共聚集[56],异源表达dgcA可显著提升EPS产量。通过调节EPS合成回路、黏附因子和基因网络提升膜的结构致密性和抗逆性[4]。
c-di-AMP通过维持细胞壁的渗透压平衡和离子稳态,为生物膜的结构完整性提供了关键生理支撑。在酸性胁迫(pH 4.5)条件下,膜电位下降会激活DNA完整性监测蛋白DisA,使其二聚体的二腺苷酸环化酶活性增强,导致胞内c-di-AMP水平迅速升高。高水平c-di-AMP能直接结合并抑制EPS合成的转录抑制子EpsR,解除对EPS操纵子的负调控,促进EPS基因的转录以及多糖前体的积累。与此同时,c-di-AMP与丙酮酸羧化酶的PC亚基B形成特异性复合物,提升UDP-葡萄糖的供应,进一步驱动EPS的合成,使乳酸菌的生物膜产量提升约1.8~2.3倍[57-58]。
c-di-GMP与c-di-AMP之间存在交叉拮抗或协同的时序调控网络:在低糖、高酸的肠道模拟环境中,c-di-AMP先通过增强碳流,为膜提供能量和前体,c-di-GMP接力完成膜结构的加固与成熟,浓度峰值呈现约20~30 min的级联延迟[59]。
3.3.2 cAMP-CRP
cAMP-CRP复合体能够感知碳源可用性,调控生物膜形成。葡萄糖丰富且需氧条件下,CRP解除对黏附因子基因负调控,促进细胞对固体基质的初始黏附。低糖或厌氧环境中,cAMP水平下降导致CRP活性受限,抑制EPS合成基因簇的表达,膜形成受阻[60]。cAMP-CRP直接结合EPS操作子上游的转录抑制子EpsR,解除其对EPS基因的抑制,促进多糖前体的积累并增强EPS基质的沉积,上调与黏附结构相关的基因以及与细胞壁渗透压平衡相关的离子转运基因,形成多层次、可塑性的调控网络,使菌体在不同营养与pH值条件下快速重塑膜结构与功能[61]。
3.4 EPS
EPS是乳酸菌生物膜的核心基质,决定膜的结构稳固性和功能特性。研究表明,在约氏乳杆菌FI9785中,EPS含量的增加使亲水性增强,导致自聚集下降,基质的黏附增强;相反,EPS缺失的突变株虽自聚集增强,在应激条件下存活能力下降。EPS在维持膜耐受性方面起到关键作用[62]。EPS还能作为三维网络捕获并固定胞外酶和金属离子,形成凝胶状基质,为细胞提供营养梯度和保护屏障,显著提升对酸、盐、胆汁盐等胃肠道不良环境的耐受性[63]。在基因层面,EPS基因簇的表达受多种信号调控,其上调常伴随生物膜厚度的同步增加,形成正反馈循环,进一步强化膜的致密性。
4 结语
生物膜形成受多重信号通路协同调控,群体感应AI-2/LuxS系统、双组分信号转导系统、寡肽类群体感应系统及第二信使(c-di-GMP与c-di-AMP)是核心网络,能够感知特定信号,通过调控EPS合成、黏附因子及相关应激基因表达,促进生物膜的结构构建与功能强化。图3展示了各因素通过时序网络,调控生物膜结构与功能。生物膜态乳酸菌在食品工业与益生菌开发领域展现出明确的应用潜力。在食品发酵工业中,使生物膜在食品基质表面实现优势定植,竞争性排斥腐败菌与致病菌,发挥天然、高效的生物防腐功能。在益生菌制剂开发领域,一种前沿方案是将益生菌封装于微胶囊内,使其在胶囊内部预先形成微菌落或生物膜样结构。这种“预适应”策略能保护菌体并在肠道中快速启动黏附程序,显著增强定植效率,从而更有效地促进后续的黏膜免疫调节等益生功能。
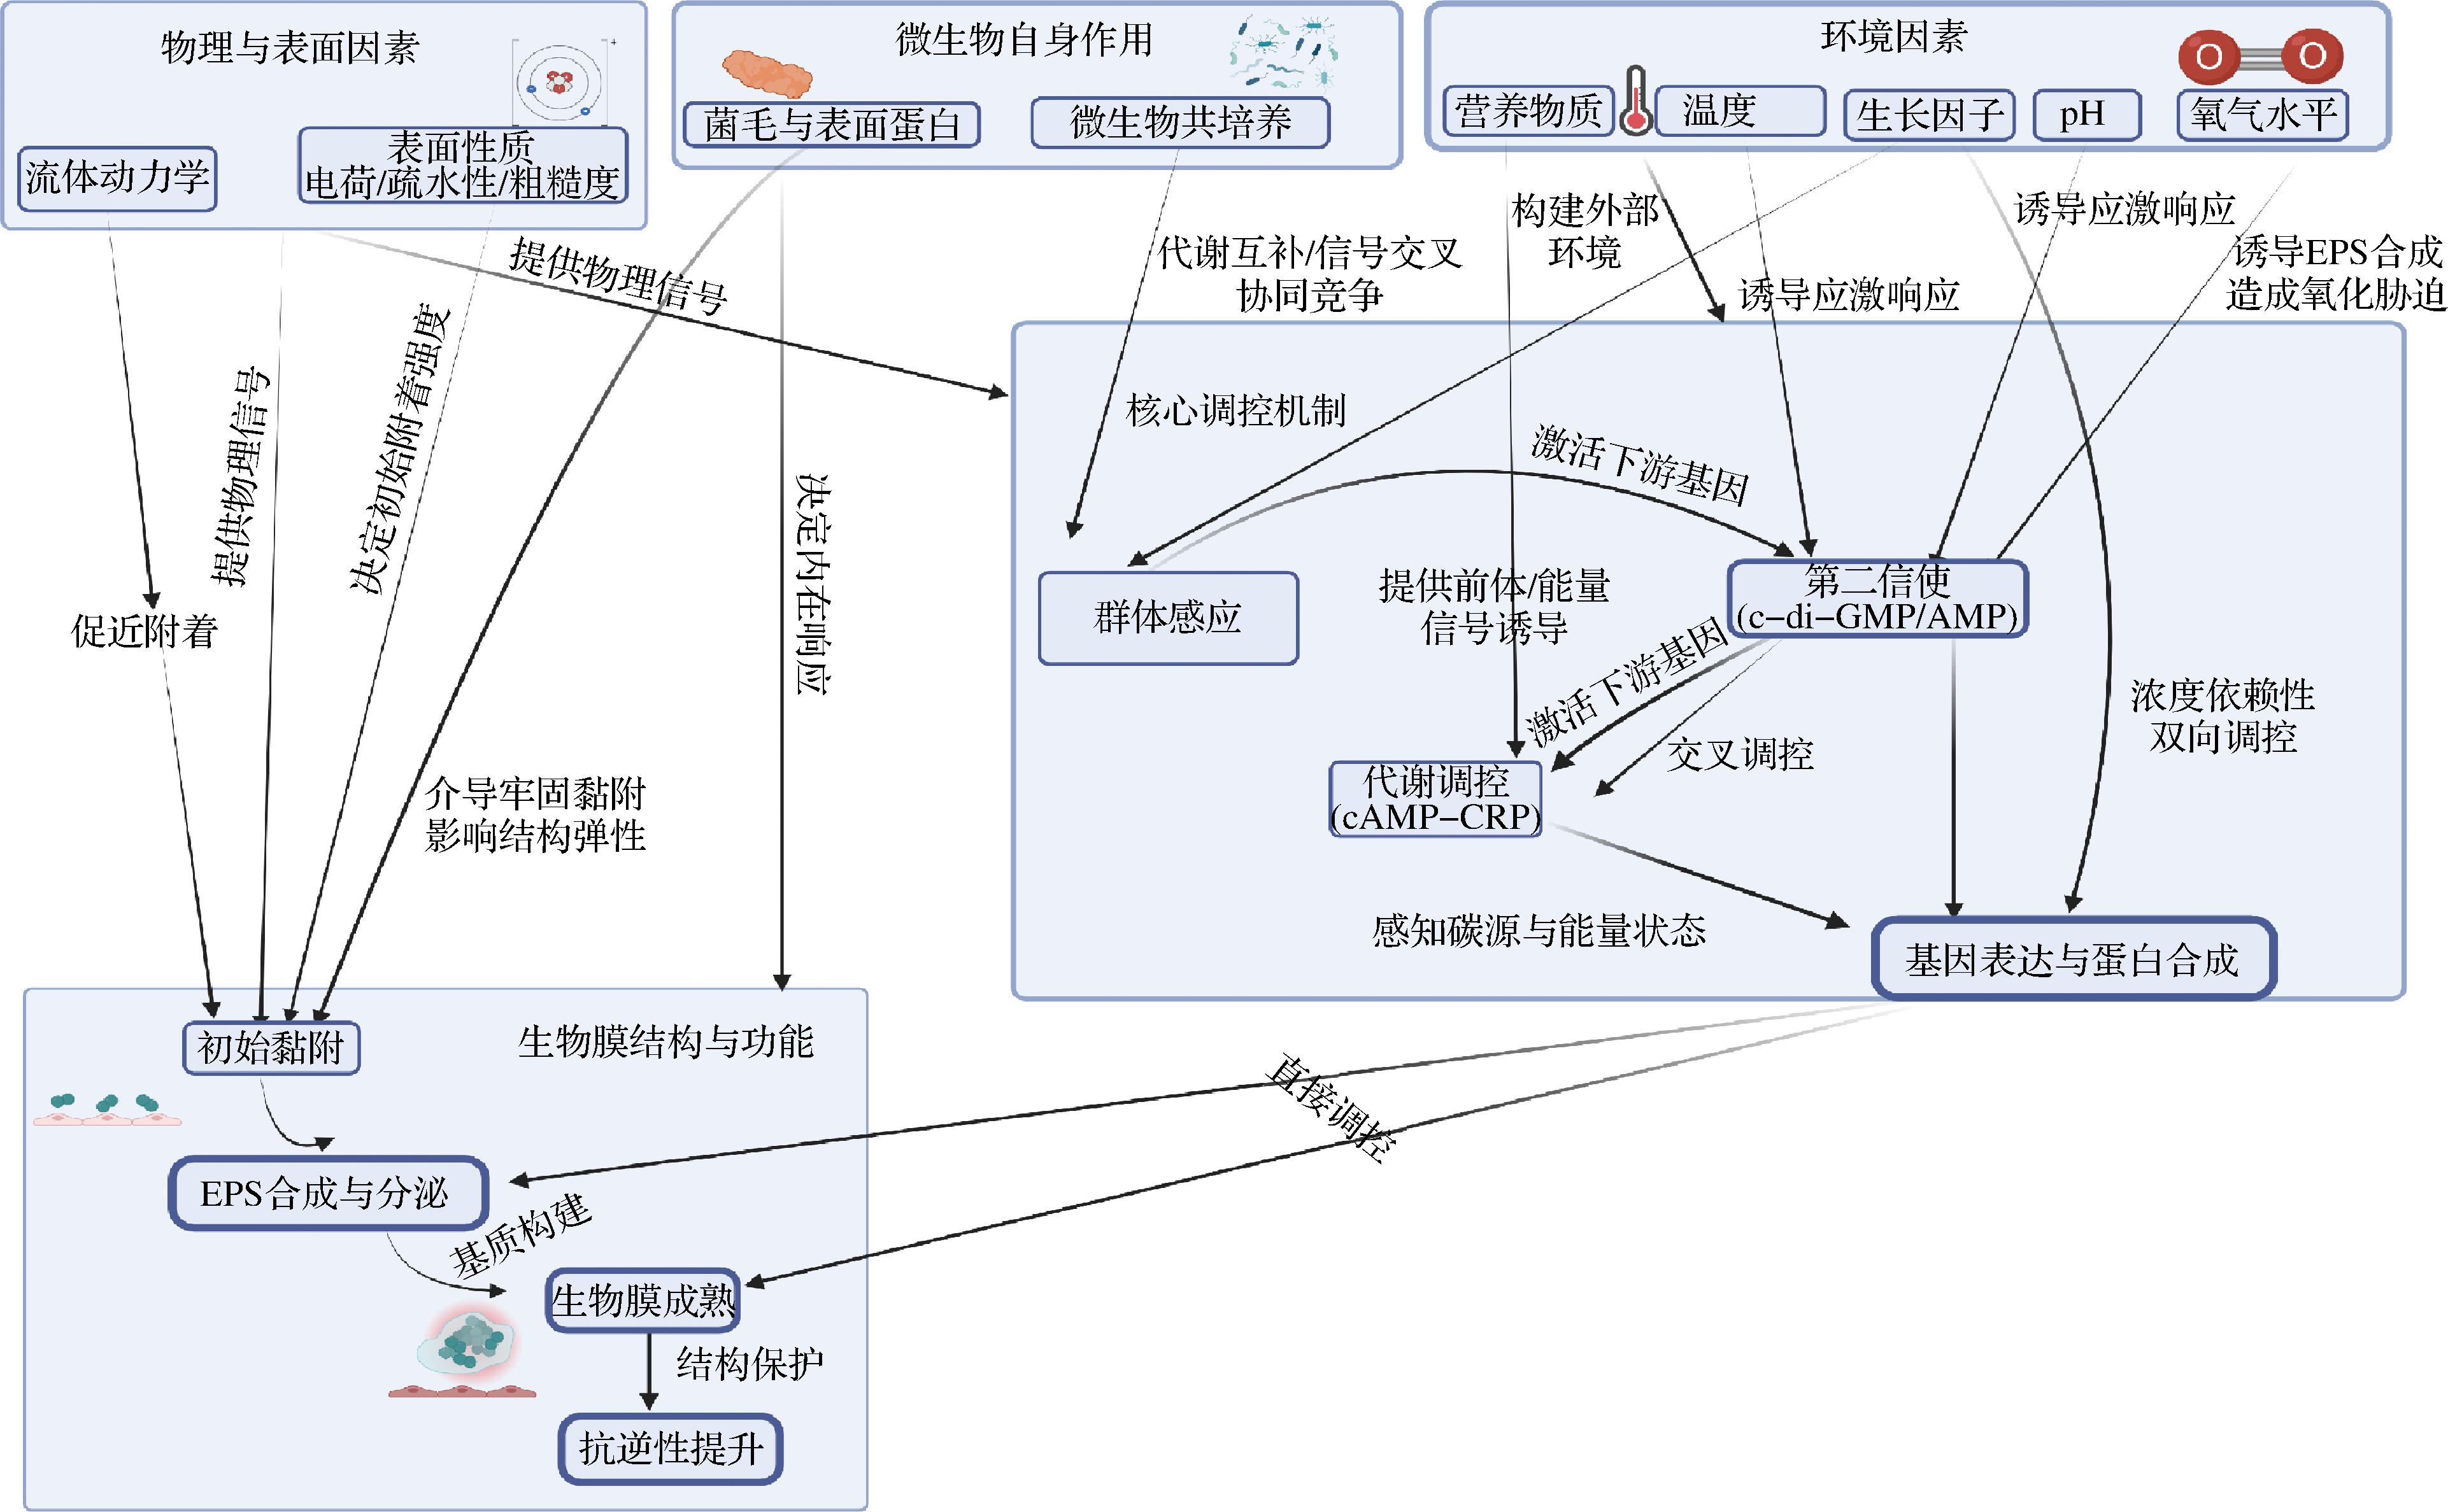
图3 乳酸菌生物膜形成的综合调控网络图
Fig.3 Integrated regulatory network diagram of lactic acid bacteria biofilm formation
未来研究还需在分子机制与生态互作2个层面深入探索,设计和高效应用生物膜态乳酸菌。在分子调控网络层面实现精确定位与解析。构建AI-2/LuxS、c-di-GMP/c-di-AMP等关键节点的基因敲除与过表达菌株,精确揭示如何调控EPS基因簇转录、黏附蛋白表达及应激反应。基于共培养原理,可以设计并构建可预测的合成菌群,利用多组学技术系统解析其种间互作机制,定量评估此类共培养体系所形成的生物膜在生物量、厚度、均匀性及抗酸、抗胆盐胁迫能力上的提升。
[1] Sharma H, Ozogul F, Bartkiene E, et al.Impact of lactic acid bacteria and their metabolites on the techno-functional properties and health benefits of fermented dairy products[J].Critical Reviews in Food Science and Nutrition, 2023, 63(21):4819-4841.
[2] Zhang Y, Gu Y, Wu R, et al.Exploring the relationship between the signal molecule AI-2 and the biofilm formation of Lactobacillus sanfranciscensis[J].LWT, 2022, 154:112704.
[3] Gu Y, Tian J J, Zhang Y, et al.Dissecting signal molecule AI-2 mediated biofilm formation and environmental tolerance in Lactobacillus plantarum[J].Journal of Bioscience and Bioengineering, 2021, 131(2):153-160.
[4] Yao P L, Mohd Esah E, Zhao C P. Regulatory mechanisms and applications of Lactobacillus biofilms in the food industry[J]. Frontiers in Microbiology, 2024, 15:1465373.
[5] Flemming H C, Wingender J.The biofilm matrix[J].Nature Reviews Microbiology, 2010, 8(9):623-633.
[6] Lianou A, Nychas G E, Koutsoumanis K P.Strain variability in biofilm formation:A food safety and quality perspective[J].Food Research International, 2020, 137:109424.
[7] Yang Q L, Wang Y, An Q, et al. Research on the role of LuxS/AI-2 quorum sensing in biofilm of Leuconostoc citreum 37 based on complete genome sequencing[J]. 3 Biotech, 2021, 11(4):189.
[8] Yao B Q, Yang Z Q, Zhao X R, et al.Biofilm-state probiotics:Advanced alternatives to traditional probiotics[J].Trends in Food Science &Technology, 2025, 156:104854.
[9] Yang S S, Hu X Y, Cang W H, et al.Biofilm-based probiotic delivery system and its application in the food industry[J].Food Bioscience, 2024, 62:105172.
[10] Zhou J W, Wu Y H, Liu D H, et al.The effect of carbon source and temperature on the formation and growth of Bacillus licheniformis and Bacillus cereus biofilms[J].LWT, 2023, 186:115239.
[11] Yunda E, Quilès F.In situ spectroscopic analysis of Lactobacillus rhamnosus GG flow on an abiotic surface reveals a role for nutrients in biofilm development[J].Biofouling, 2019, 35(5):494-507.
[12] Li J Y, Mu G Q, Tuo Y F.Phenotypic traits and probiotic functions of Lactiplantibacillus plantarum Y42 in planktonic and biofilm forms[J].Foods, 2023, 12(7):1516.
[13] Yao S J, Yang H, Zhang M, et al.Sucrose contributed to the biofilm formation of Tetragenococcus halophilus and changed the biofilm structure[J].Food Microbiology, 2024, 124:104616.
[14] Limoli D H, Jones C J, Wozniak D J.Bacterial extracellular polysaccharides in biofilm formation and function[J].Microbiology Spectrum, 2015, 3(3):10.
[15] Degeest B, De Vuyst L.Indication that the nitrogen source influences both amount and size of exopolysaccharides produced by Streptococcus thermophilus LY03 and modelling of the bacterial growth and exopolysaccharide production in a complex medium[J].Applied and Environmental Microbiology, 1999, 65(7):2863-2870.
[16] 汪晓雅, 陈芳, 刘思慧, 等.不同胁迫体系对植物乳杆菌zwq9生物膜形成及其产蛋白酶活力的影响[J].食品研究与开发, 2023, 44(5):194-201.Wang X Y, Chen F, Liu S H, et al.Effects of different stress systems on the biofilm formation and protease-producing activity of Lactobacillus plantarum zwq9[J].Food Research and Development, 2023, 44(5):194-201.
[17] Muruzovi M Ž, Mladenovi K G,
 omi L R.In vitro evaluation of resistance to environmental stress by planktonic and biofilm form of lactic acid bacteria isolated from traditionally made cheese from Serbia[J].Food Bioscience, 2018, 23:54-59.
[18] Liu Y S, Shen K S, Liu Q, et al.Transcriptomics analysis of the mechanism behind Lactobacillus rhamnosus Gr18 biofilm formation in an Mn2+deficient environment[J].LWT, 2024, 200:116163.
[19] Shokeen B, Pham E, Esfandi J, et al.Effect of calcium ion supplementation on oral microbial composition and biofilm formation in vitro[J].Microorganisms, 2022, 10(9):1780.
[20] Wang T Y, Flint S, Palmer J.Magnesium and calcium ions:roles in bacterial cell attachment and biofilm structure maturation[J].Biofouling, 2019, 35(9):959-974.
[21] 赵佳伟, 敖晓琳, 蔡义民, 等.金属离子对植物乳杆菌 RS66CD 生物膜形成及环境耐受性的影响[J].食品与发酵工业, 2019, 45(21):46-52.Zhao J W, Ao X L, Cai Y M, et al. Effect of metal ions on the biofilm formation and environmental tolerance of Lactobacillus plantarum RS66CD[J]. Food and Fermentation Industries, 2019, 45(21):46-52.
[22] E J J, Ma R Z, Chen Z C, et al. Improving the freeze-drying survival rate of Lactobacillus plantarum LIP-1 by increasing biofilm formation based on adjusting the composition of buffer salts in medium[J]. Food Chemistry, 2021, 338:128134.
[23] Slí ov
 M, Nemcov R, Mad’Ar M, et al.Analysis of biofilm formation by intestinal Lactobacilli[J].Canadian Journal of Microbiology, 2015, 61(6):437-446.
[24] Al Azzaz J, Al Tarraf A, Heumann A, et al.Resveratrol favors adhesion and biofilm formation of Lacticaseibacillus paracasei subsp.paracasei strain ATCC334[J].International Journal of Molecular Sciences, 2020, 21(15):5423.
[25] Slobodníkov L, Fialov S, Rendekov K, et al.Antibiofilm activity of plant polyphenols[J].Molecules, 2016, 21(12):1717.
[26] Alfarrayeh I, Fekete C, Gazdag Z, et al.Propolis ethanolic extract has double-face in vitro effect on the planktonic growth and biofilm formation of some commercial probiotics[J].Saudi Journal of Biological Sciences, 2021, 28(1):1033-1039.
[27] 谢丽斯, 张宏梅, 刘学禄, 等.从腐败食品中分离的乳酸菌生物被膜形成的影响因素[J].食品与发酵工业, 2011, 37(3):6-8.Xie L S, Zhang H M, Liu X L, et al.Effect of different cultivation conditions on biofilm formation of lactic acid bacteria isolated from spoiled food[J].Food and Fermentation Industries, 2011, 37(3):6-8.
[28] Ramírez M D F, Smid E J, Abee T, et al.Characterisation of biofilms formed by Lactobacillus plantarum WCFS1 and food spoilage isolates[J].International Journal of Food Microbiology, 2015, 207:23-29.
[29] Nguyen P T, Nguyen T T, Bui D C, et al.Exopolysaccharide production by lactic acid bacteria:The manipulation of environmental stresses for industrial applications[J].AIMS Microbiology, 2020, 6(4):451-469.
[30] Yan M H, Wang B H, Xu X F, et al.Extrusion of dissolved oxygen by exopolysaccharide from Leuconostoc mesenteroides and its implications in relief of the oxygen stress[J].Frontiers in Microbiology, 2018, 9:2467.
[31] Yu T, Kong J, Zhang L, et al.New crosstalk between probiotics Lactobacillus plantarum and Bacillus subtilis[J].Scientific Reports, 2019, 9:13151.
[32] Salzillo M, Vastano V, Capri U, et al.Pyruvate dehydrogenase subunit β of Lactobacillus plantarum is a collagen adhesin involved in biofilm formation[J].Journal of Basic Microbiology, 2017, 57(4):353-357.
[33] Sequeira S, Kavanaugh D, MacKenzie D A, et al. Structural basis for the role of serine-rich repeat proteins from Lactobacillus reuteri in gut microbe-host interactions[J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(12): E2706-E2715.
[34] 朱晓青, 李博, 陈芳怡, 等.不同乳酸菌响应乙醇胁迫生物膜形成的差异性分析[J].食品安全质量检测学报, 2025, 16(8):161-169.Zhu X Q, Li B, Chen F Y, et al.Differential analysis of biofilm formation of different lactic acid bacteria in response to ethanol stress[J].Journal of Food Safety and Quality, 2025, 16(8):161-169.
[35] 盖昱梓, 孙静娴, 黄刚, 等.苹果酸-乳酸发酵细菌乙醇胁迫应答机制研究进展[J].食品与发酵工业, 2021, 47(3):288-293.Gai Y Z, Sun J X, Huang G, et al.The response mechanism of bacteria to ethanol stress in malolactic fermentation[J].Food and Fermentation Industries, 2021, 47(3):288-293.
[36] Thomen P, Robert J, Monmeyran A, et al.Bacterial biofilm under flow:First a physical struggle to stay, then a matter of breathing[J].PLoS One, 2017, 12(4):e0175197.
[37] Rashtchi P, Tempelaars M, Van Der Linden E, et al.Lactobacillus plantarum strains show diversity in biofilm formation under flow conditions[J].Heliyon, 2022, 8(12):e12602.
[38] Samrot A V, Abubakar Mohamed A, Faradjeva E, et al. Mechanisms and impact of biofilms and targeting of biofilms using bioactive compounds: A review[J]. Medicina, 2021, 57(8):839.
[39] Hu M X, He F, Tu C K, et al.Edible electrospun zein nanofibrous scaffolds close the gaps in biofilm formation ability between microorganisms[J].Food Bioscience, 2023, 56:103394.
[40] Yunda E, Alem H, Francius G, et al.Chemical functionalization of the zinc selenide surface and its impact on Lactobacillus rhamnosus GG biofilms[J].ACS Applied Materials &Interfaces, 2020, 12(13):14933-14945.
[41] Pérez-Ibarreche M, Castellano P, Leclercq A, et al.Control of Listeria monocytogenes biofilms on industrial surfaces by the bacteriocin-producing Lactobacillus sakei CRL1862[J].FEMS Microbiology Letters, 2016, 363(12):fnw118.
[42] Drame I, Lafforgue C, Formosa-Dague C, et al.Pili and other surface proteins influence the structure and the nanomechanical properties of Lactococcus lactis biofilms[J].Scientific Reports, 2021, 11:4846.
[43] Zhang B X, Sun Y X, Han W Y, et al.Interspecies interactions promote dual-species biofilm formation by Lactiplantibacillus plantarum and Limosilactobacillus fermentum: Phenotypic and metabolomic insights[J].Food Research International, 2025, 211:116388.
[44] 何名芳, 陈卫平.乳酸菌抑制致病菌黏附作用机制研究进展[J].食品工业科技, 2013, 34(20):386-389;399.He M F, Chen W P.The development of the Lactobacillus adhensive effects mechanism in inhibiting the pathogen microorganism[J].Science and Technology of Food Industry, 2013, 34(20):386-389;399.
[45] Teame T, Wang A R, Xie M X, et al. Paraprobiotics and postbiotics of probiotic Lactobacilli, their positive effects on the host and action mechanisms: A review[J]. Frontiers in Nutrition, 2020, 7:570344.
[46] Ye Q W, Lao L F, Zhang A, et al.Multifunctional properties of the transmembrane LPxTG-motif protein derived from Limosilactobacillus reuteri SH-23[J].Journal of Dairy Science, 2023, 106(12):8207-8220.
[47] Cheng T T, Li J L, Fu M Q, et al.Screening and adhesion properties of S-layer protein producing Lactobacillus from Tibet kefir[J].Journal of Chinese Institute of Food Science and Technology, 2024, 24(11):32-39.
[48] Ren C C, Zhang Q X, De Haan B J, et al.Identification of TLR2/TLR6 signalling lactic acid bacteria for supporting immune regulation[J].Scientific Reports, 2016, 6:34561.
[49] Kanthenga H T, Banicod R J S, Ntege W, et al. Functional diversity of AI-2/LuxS system in lactic acid bacteria: Impacts on biofilm formation and environmental resilience[J]. Research in Microbiology, 2025, 176(5-6):104296.
[50] 魏光强, 王藤, 赵波, 等.群体感应信号分子 AI-2 调控乳酸菌生物膜形成机制的研究进展[J].食品科学技术学报, 2023, 41(2):141-153.Wei G Q, Wang T, Zhao B, et al.Research progress of formation mechanism of quorum sensing signal molecule AI-2 regulated lactic acid bacteria biofilm[J].Journal of Food Science and Technology, 2023, 41(2):141-153.
[51] Ma R H, Qiu S W, Jiang Q, et al.AI-2 quorum sensing negatively regulates rbf expression and biofilm formation in Staphylococcus aureus[J].International Journal of Medical Microbiology, 2017, 307(4-5):257-267.
[52] Salas-Jara M J, Ilabaca A, Vega M, et al.Biofilm forming Lactobacillus:New challenges for the development of probiotics[J].Microorganisms, 2016, 4(3):35.
[53] Su M S, Gänzle M G. Novel two-component regulatory systems play a role in biofilm formation of Lactobacillus reuteri rodent isolate 100-23[J]. Microbiology, 2014, 160(Pt 4):795-806.
[54] Caillot Q, Guillot A, Lacroix T, et al.RRNPP quorum-sensing repertoires in the salivarius group genomes:Overrepresentation and synchronous activation of SHP/Rgg systems in Streptococcus thermophilus[J].Journal of Bacteriology, 2025, 207(9):e0023125.
[55] Wang W Z, Kyrkou I, Bojer M S, et al.Characterization of agr-like loci in Lactiplantibacillus plantarum and L.paraplantarum and their role in quorum sensing and virulence inhibition of Staphylococcus aureus[J].Probiotics and Antimicrobial Proteins, 2025, 17(4):2332-2347.
[56] He J H, Ruan W H, Sun J L, et al.Functional characterization of c-di-GMP signaling-related genes in the probiotic Lactobacillus acidophilus[J].Frontiers in Microbiology, 2018, 9:1935.
[57] Sureka K, Choi P H, Precit M, et al.The cyclic dinucleotide c-di-AMP is an allosteric regulator of metabolic enzyme function[J].Cell, 2014, 158(6):1389-1401.
[58] Gndara C.Role of DisA and c-di-AMP in the DNA damage response of exponentially growing Bacillus subtilis cells[D].Madrid:Universidad Autónoma de Madrid, 2015.
[59] Sun D, Liu X B, Zhang Y, et al.Local c-di-GMP signaling, triggered by cross-regulation of cAMP-CRP and c-di-GMP, controls biofilm formation under nutrient limitation[J].Proceedings of the National Academy of Sciences of the United States of America, 2025, 122(35):e2516964122.
[60] Liu C, Sun D, Zhu J R, et al.The regulation of bacterial biofilm formation by cAMP-CRP:A mini-review[J].Frontiers in Microbiology, 2020, 11:802.
[61] Liu C, Sun D, Liu J W, et al.cAMP and c-di-GMP synergistically support biofilm maintenance through the direct interaction of their effectors[J].Nature Communications, 2022, 13(1):1493.
[62] Dertli E, Mayer M J, Narbad A.Impact of the exopolysaccharide layer on biofilms, adhesion and resistance to stress in Lactobacillus johnsonii FI9785[J].BMC Microbiology, 2015, 15:8.
[63] Hooshdar P, Kermanshahi R K, Ghadam P, et al.A review on production of exopolysaccharide and biofilm in probiotics like Lactobacilli and methods of analysis[J].Biointerface Research in Applied Chemistry, 2020, 10(5):6058-6075.