益生菌是指活的非致病微生物,当给予适当量时,对宿主的健康有益[1]。在众多益生菌候选菌种中,乳酸菌(lactic acid bacteria,LAB)因其在食品发酵、促进宿主健康及调节免疫等方面的功能而受到广泛关注[2]。传统发酵牦牛乳是青藏高原地区微生物资源的重要宝库,其优势菌群主要为乳酸菌。乳酸菌通过在人和动物肠道中有效黏附与定植,促进宿主肠道微生态稳态,具有改善肠道健康、缓解胃肠道疾病[3]、调节肠道菌群平衡、增强机体免疫力[4]以及抑制病原菌的入侵与定植[5]等多种功能,在促进人类和动物健康方面,乳酸菌正发挥着越来越重要的作用。此外,已有研究表明,乳酸菌在发酵代谢中发挥重要作用[6],因此,分离和鉴定传统发酵牦牛乳中的乳酸菌具有重要的研究和应用价值。理想的候选菌株应具备耐胃酸和胆汁盐、良好的肠道黏附能力、显著的抗氧化效能、对病原菌的抑制作用,以及无抗生素耐药基因和溶血活性[7]。由于益生菌效果受菌株遗传差异影响,传统筛选方法不够全面,因此需要结合基因组学对菌株进行深入评估。高通量测序和比较基因组学的发展使得基因组分析成为评估益生菌功能和安全性的关键手段[8]。通过全面解析菌株基因组,可以识别与功能和生物活性相关的基因,揭示其抗病机制及与宿主的相互作用[9],同时筛选出不含有抗生素耐药基因的安全菌株。这为益生菌的安全性评估和产业化应用提供了科学基础。目前,发酵牦牛乳源乳酸菌的研究多集中于传统分离和基础益生特性分析,而结合全基因组测序(whole genome sequencing,WGS)的系统研究仍较少。
因此,本研究以传统发酵牦牛乳中分离得到的副干酪乳酪杆菌(Lacticaseibacillus paracasei)CD12-1为研究对象,系统评价其益生功能,并通过Illumina+PacBio双平台测序进行全基因组分析,对其功能基因与安全性进行深入分析。研究旨在为高原地区牦牛乳源L.paracasei CD12-1作为潜在益生菌的开发与应用提供理论依据和科学支撑。
1 材料与方法
1.1 材料与试剂
92份样品来源于新疆和西藏不同牧区,牧民通过传统发酵方式得到的牦牛乳。收集样品时,用无菌吸管吸取,加入到50 mL无菌无酶离心管中,并置于装有冰袋的隔热箱中快速运回实验室,及时进行菌株的分离。
金黄色葡萄球菌(Staphylococcus aureus)ATCC 6538,南京乐诊生物技术有限公司;MRS培养基,广东环凯微生物科技有限公司;牛胆盐、胃蛋白酶、胰蛋白酶,上海源叶生物科技有限公司;抗生素药敏纸片,常德比克曼生物科技有限公司;哥伦比亚血琼脂平板,青岛海博生物科技有限公司;其余试剂均为分析纯。
1.2 仪器与设备
HGZF-101-1电热恒温鼓风干燥箱、HPX-200生化培养箱,上海跃进医疗器械有限公司;LDZM-60L-I立式高压蒸汽灭菌器,上海申安医疗器械厂;SW-CJ-2FD洁净工作台,苏州安泰空气技术有限公司;Multiskan FC酶标仪,美国Thermo公司。
1.3 实验方法
1.3.1 菌株的分离纯化
在超净台中称取1 g样品,使用无菌水依次稀释至10-4、10-5、10-6,分别取100 μL涂布于MRS固体培养基上,37 ℃培养48 h。挑取白色或乳白色单菌落,进行多次划线纯化。将经革兰氏染色呈紫色、接触酶实验为阴性的单菌落初步判定为乳酸菌。筛选后的菌株保藏于甘油管中,置于-80 ℃冻存。
1.3.2 筛选菌株的益生评价
1.3.2.1 耐酸能力测定
使用1 mol/L HCl溶液将MRS肉汤培养基pH值调整为3.0,将活化的乳酸菌按3%接种量接种于pH值为3.0的MRS培养基中,以pH值为6.8的MRS为对照,37 ℃培养3 h,测定OD600 nm值[10]。
1.3.2.2 耐胆盐能力测定
参考Nami等[11]的方法,将3%(体积分数)活化试验菌株的菌悬液接种到牛胆盐质量浓度为3 g/L的新鲜MRS肉汤培养基中,以不含胆盐的MRS为对照,37 ℃下培养24 h。分别取0 h和4 h菌液进行稀释涂布测定活菌数。
1.3.2.3 人工胃肠液耐受性
按照Liu等[12]的方法配制人工胃肠液。将活化的乳酸菌按体积比1∶10接种于人工胃液中,37 ℃摇床培养3 h后取样进行活细胞计数,同时将人工胃液处理3 h后的菌悬液按体积比1∶10进一步接种于人工肠液中,37 ℃摇床培养3 h后取样进行活细胞计数。
1.3.2.4 自聚集和疏水能力测定
参照郑娟善[13]的方法并稍作修改,首先将活化的菌株离心(4 ℃,4 500 r/min,10 min),弃上清液收集菌体,用无菌PBS(pH 7.4)洗涤2~3次后重悬,将浓度调整为108 CFU/mL。
自聚能力的检测:将活化后的菌液涡旋10 s,37 ℃静置2 h,吸取上层水相,测定OD600 nm值,自聚能力的计算如公式(1)所示:
自聚能力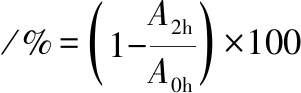
(1)
式中:A0h,混匀静置0 h时的吸光度;A2h,混匀静置2 h后的吸光度。
疏水性的测定:吸取3 mL的菌液与1 mL的二甲苯涡旋1 min混匀静止5 min;吸取上层水相,测定OD600 nm值,疏水性的计算如公式(2)所示:
疏水性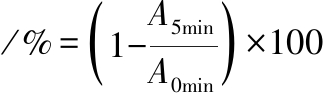
(2)
式中:A0min,加入有机溶剂混匀后,静置0 min水相菌液吸光度;A5min,静置5 min后水相的吸光度。
1.3.2.5 DPPH自由基清除能力测定
参考Li等[14]的检测方法并稍作修改,测定筛选菌株完整细胞悬液和发酵上清液对DPPH自由基的清除能力。
1.3.3 安全性评价
1.3.3.1 抗生素敏感
根据临床和实验室标准研究所(institute of clinical and laboratory standards,CLSI)的指南,使用纸片扩散法测试选定菌株的敏感性[15]。将菌株涂布于MRS固体培养基上,放置青霉素、四环素、链霉素、环丙沙星、头孢唑林、红霉素、庆大霉素、氯霉素8种药敏纸片,37 ℃培养24 h,用游标卡尺测量抑菌圈直径。
1.3.3.2 溶血能力
采用点接种法,将乳酸菌单菌落接种在哥伦比亚血琼脂平板上,37 ℃培养48 h后观察单菌落周围颜色变化。以金黄色葡萄球菌作为阳性对照,进行菌落周围溶血圈的观察及记录[16]。
1.3.4 L.paracasei CD12-1的全基因组测序
1.3.4.1 测定方法
收集菌体,送至上海美吉生物公司进行测序。利用第二代Illumina平台和第三代PacBio Sequel单分子测序技术对菌株CD12-1进行全基因组测序。将3种测序方法的结果用Flye和Unicycler软件进行拼接,利用SOAPdenovo对二代测序数据进行基因组组装,并采用GapCloser对组装结果中的gap区域进行填补。随后,将二代测序获得的高质量数据与初始组装结果进行比对,获得该菌株的基因组序列。用GeneMarkS软件进行全基因组序列分析,进行基因预测,用CGView软件进行基因组图谱可视化。
1.3.4.2 蛋白质编码基因注释
预测得到的蛋白质编码基因序列通过多种数据库进行功能注释,包括NCBI非冗余蛋白数据库(NCBI non-redundant protein database,NR)、高质量人工注释蛋白数据库(swiss protein database,Swiss-Prot)、基因本体论(gene ontology,GO)、京都基因与基因组百科全书(kyoto encyclopedia of genes and genomes,KEGG)以及蛋白质直系同源聚类群(clusters of orthologous groups of protein,COG)。注释过程中采用BLASTP/DIAMOND进行比对,E-value阈值设定为1×10-5,以确保比对结果的可靠性。
1.3.4.3 L.paracasei CD12-1功能基因分析
对抗氧化、抗逆性、抑菌及黏附相关功能基因进行深入分析。查阅文献并结合KEGG等通路信息,整理出已报道与上述功能相关的代表性基因集。随后,利用DIAMOND/BLASTP将预测得到的蛋白质序列与NCBI、NR、SwissProt、KEGG等数据库中对应功能的蛋白序列进行比对(E-value阈值1×10-5)。根据比对结果对候选基因进行注释,并结合功能描述进行分类和筛选。
1.3.4.4 毒力因子和抗生素抗性基因分析
采用DIAMOND软件,将基因编码蛋白序列与毒力因子相关基因数据库(virulence factors database,VFDB)以及抗生素抗性数据库(comprehensive antibiotic research database,CARD)进行比对,预测在基因组中与毒力因子以及抗生素抗性相关的基因。参考已有研究[17],筛选阈值设定为E-value<1×10⁻⁵且一致性≥60%,以确保能够捕获潜在的变异毒力因子及水平转移元件。重点关注是否存在典型侵袭性病原菌常见的致病因子。对于鉴定出的毒力基因,进一步通过KEGG、COG数据库进行通路富集分析,以评估其在代谢或非典型致病过程中的功能归属。
1.4 数据处理
数据均为3次重复试验结果的平均值。数据处理采用SPSS 27.0软件进行统计分析,结果以“平均值±标准差”表示,使用ANOVA检验进行差异显著性分析(P<0.05表示差异显著);使用Origin Pro软件绘制柱状图。
2 结果与分析
2.1 菌株的分离结果
根据革兰氏染色为紫色和接触酶实验为阴性,从92份样品中共筛选得到101株乳酸菌候选株,纯化后的菌株在MRS固体培养基上菌落形态较小,呈乳白色、圆形且边缘整齐,并且伴有酸味。
2.2 菌株耐酸耐胆盐能力
低酸与胆盐是乳酸菌在宿主胃肠道中定植的主要影响因素,因此耐受酸性与胆盐胁迫的能力是筛选功能性益生菌的重要指标。本研究以耐受低酸性为初筛指标。将101株乳酸菌在pH 3.0的MRS培养基中培养3 h,结果显示所有菌株均能存活,但耐酸性差异显著(P<0.05)。存活率介于8.91%~90.01%之间,其中有32株菌株的存活率超过60%,表现出较强的耐酸能力。
为进一步评价乳酸菌的耐胆盐能力,将32株筛选菌株接种于含0.3%胆盐的MRS培养基中。结果显示,在该条件下,菌株存活率介于13.12%~75.42%之间,所有菌株的活菌数均维持在107 CFU/mL以上。11株菌株的存活率超过30%,表现出较强的胆盐耐受性。这一结果表明,部分乳酸菌具备较好的胆盐耐受能力,为其在胃肠道环境中的存活和定植提供了潜在保障。32株菌株耐酸能力及11株菌株耐胆盐能力如电子增强出版附表1和附表2所示(https://doi.org/10.13995/j.cnki.11-1802/ts.045207,下同)。
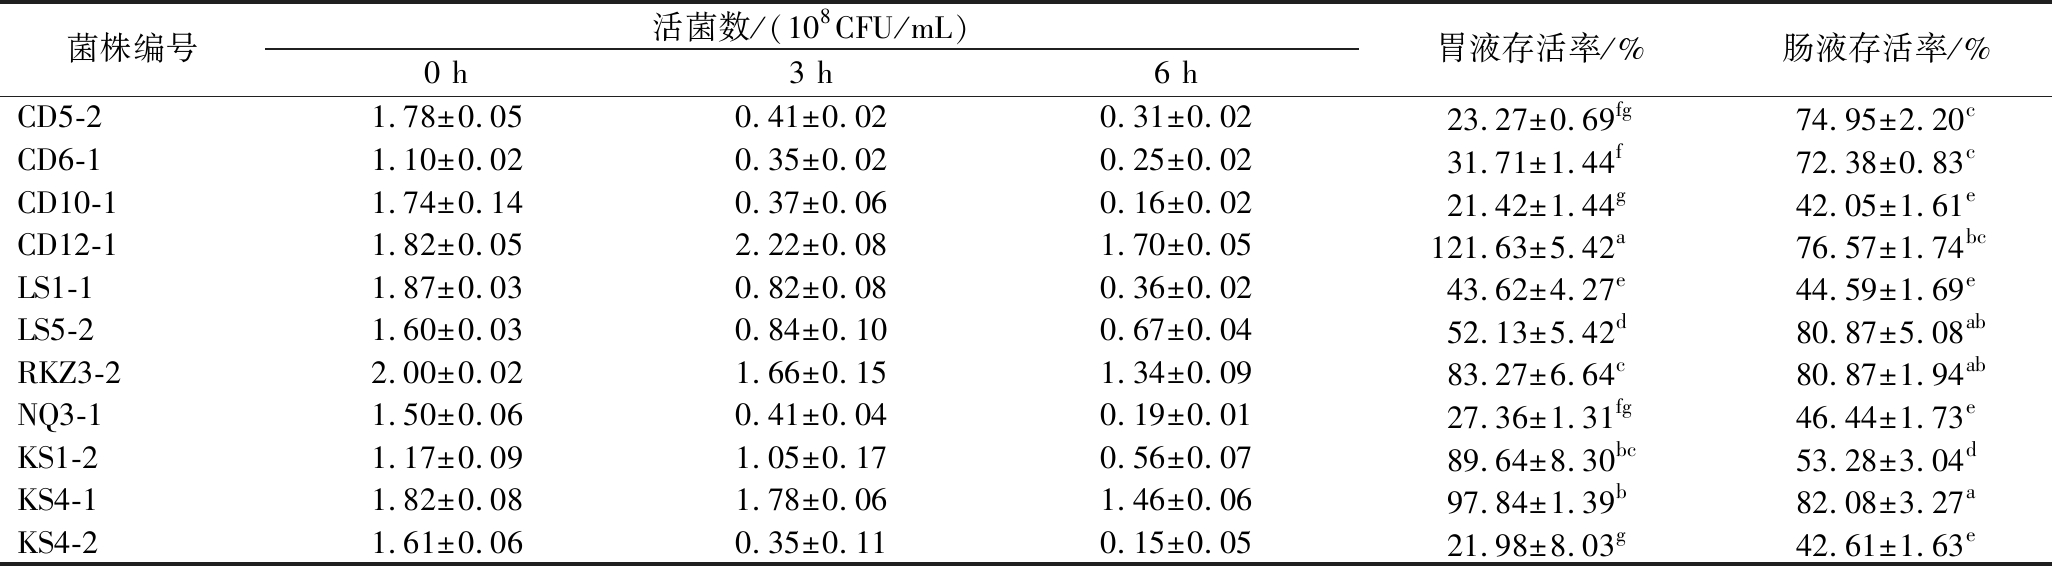
表1 乳酸菌在人工胃肠液中的耐受性
Table 1 Tolerance of LAB in artificial gastrointestinal fluids
注:小写字母不同表示差异显著(P<0.05)。
菌株编号活菌数/(108CFU/mL)0 h3 h6 h胃液存活率/%肠液存活率/%CD5-21.78±0.050.41±0.020.31±0.0223.27±0.69fg74.95±2.20cCD6-11.10±0.020.35±0.020.25±0.0231.71±1.44f72.38±0.83cCD10-11.74±0.140.37±0.060.16±0.0221.42±1.44g42.05±1.61eCD12-11.82±0.052.22±0.081.70±0.05121.63±5.42a76.57±1.74bcLS1-11.87±0.030.82±0.080.36±0.0243.62±4.27e44.59±1.69eLS5-21.60±0.030.84±0.100.67±0.0452.13±5.42d80.87±5.08abRKZ3-22.00±0.021.66±0.151.34±0.0983.27±6.64c80.87±1.94abNQ3-11.50±0.060.41±0.040.19±0.0127.36±1.31fg46.44±1.73eKS1-21.17±0.091.05±0.170.56±0.0789.64±8.30bc53.28±3.04dKS4-11.82±0.081.78±0.061.46±0.0697.84±1.39b82.08±3.27aKS4-21.61±0.060.35±0.110.15±0.0521.98±8.03g42.61±1.63e
2.3 模拟人工胃肠液条件下的存活率
益生菌的胃肠道耐受性是其定植和发挥益生功能的关键[18]。模拟胃肠液中低pH值、胃蛋白酶、胆盐和胰蛋白酶的环境不利于乳酸菌的生长繁殖[19]。如表1所示,所有菌株在pH 3.0模拟胃液中处理3 h后存活率差异显著(P<0.05)。菌株CD12-1表现出最强的耐受性,存活率高达121.63%;RKZ3-2、KS1-2、KS4-1和LS5-2存活率均超过50%。这一高存活率可能与发酵牦牛乳本身的低pH有关,乳酸菌通过发酵产生酸性物质,导致乳液pH值降低,帮助菌株适应胃液环境。同时,CD12-1的耐受性与已报道益生菌L.casei Zhang相似,其在pH值为3.0的人工胃液中培养3 h后存活率为100%[20],支持其作为潜在益生菌的应用前景。其他菌株存活率较低,介于21.42%~43.62%。
相比之下,模拟人工肠液对菌株存活影响较小(表1)。在人工肠液中培养3 h后,菌株存活率介于42.05%~82.08%之间。其中,CD10-1、NQ3-1、LS1-1和KS4-2的存活率分别为42.05%、46.44%、44.59%和42.61%,显著低于其他菌株(P<0.05),提示其对肠液环境适应性不足。其余菌株的存活率均高于50%。
综合分析,菌株CD12-1、LS5-2、RKZ3-2、KS1-2和KS4-1在模拟胃肠液中均表现出较好的耐受性,具备在肠道环境中存活和定植的潜力,为其发挥益生功能奠定了基础。
2.4 自聚集和疏水能力
细胞表面疏水性和自聚集特性是益生菌细胞表面特性的指示性参数[21],二者水平越高,其黏附性越好,更易于细菌在肠黏膜表面的定植。本研究通过测定菌株的自聚集性和疏水性来间接评价其在肠道中的黏附能力。结果如图1所示,除菌株RKZ3-2外,其余4株菌株的自聚集率均大于60%,表明其具有较好的自聚集能力。其中,菌株CD12-1的自聚集率最高,显著高于其他菌株(P<0.05)。Qureshi等[22]发现,L.paracasei ZFM54具有较高的疏水性(84.76%),其自聚集率在5 h内由29.6%升高至79.8%。相比之下,本研究中的CD12-1菌株仅用2 h便达到更高的自聚集率,进一步表明其具备更强的结合潜力和屏障功能。在表面疏水性方面,5株乳酸菌均表现出一定程度的疏水性,但不同菌株之间差异显著。其中,CD12-1的疏水率最高,显著高于其他菌株(P<0.05),KS4-1次之。
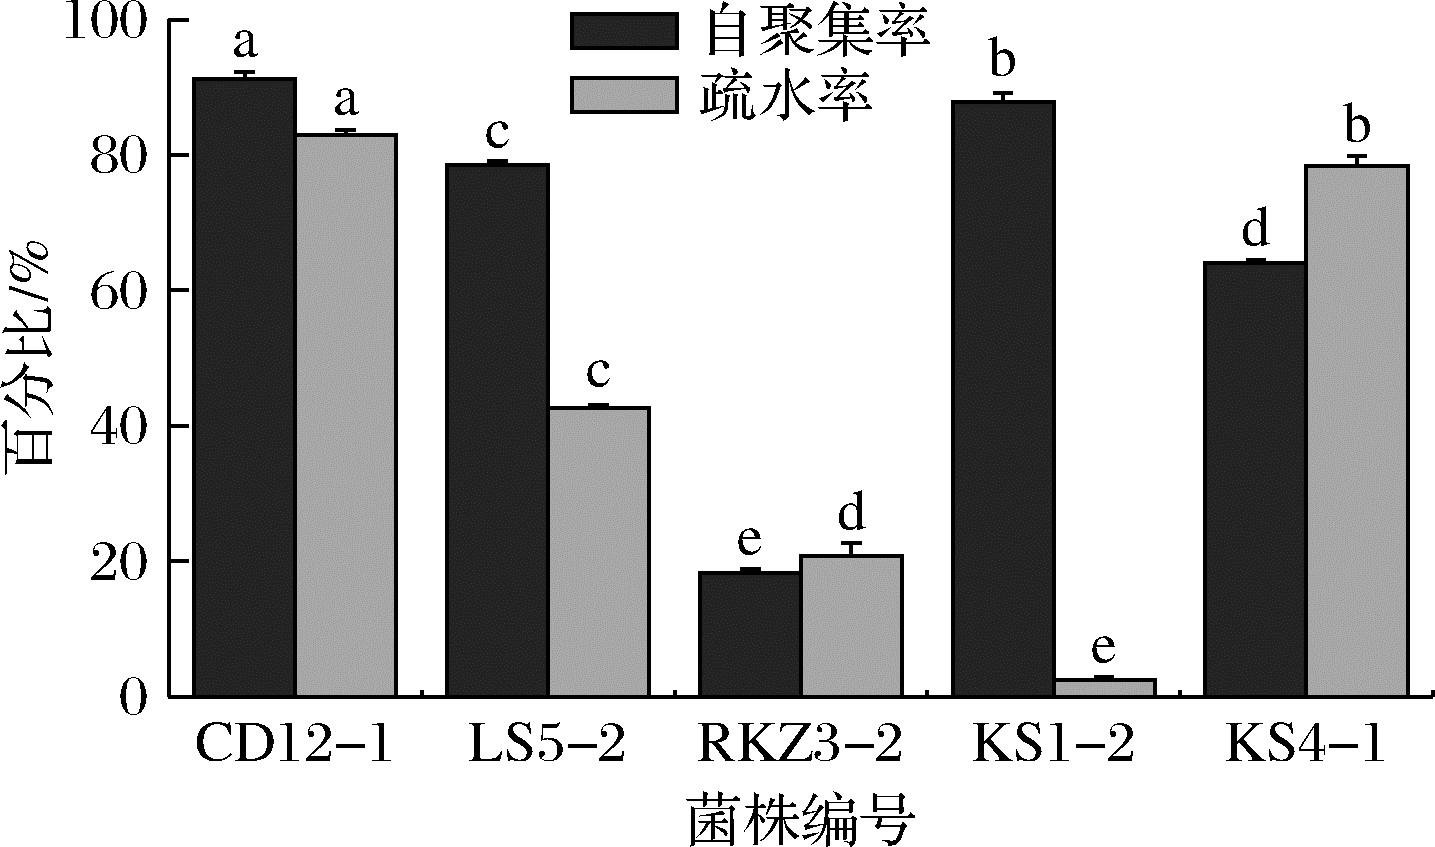
图1 菌株的自聚集率和疏水率
Fig.1 Hydrophobicity and self-aggregation rate of the strain
注:小写字母不同表示差异显著(P<0.05),下同。
综合分析,菌株CD12-1在自聚集性和疏水性方面均表现出显著优势,表明其对肠道上皮细胞的黏附能力可能较强,易发挥自身的益生作用。
2.5 DPPH自由基清除能力
已有研究表明DPPH自由基清除率的大小与测定样品的抗氧化能力有关,清除率越高,抗氧化活性越强[23]。当乳酸菌菌株DPPH自由基清除率大于30%时,认为其具有高抗氧化活性[24]。5株乳酸菌候选株的体外抗氧化活性结果如图2所示。所有菌株发酵上清液的DPPH自由基清除率均显著高于完整细胞悬液(P<0.05),表明抗氧化活性主要来自其代谢产物。进一步比较发酵上清液的抗氧化能力发现,所有菌株均表现出高的DPPH自由基清除率,这与Qureshi等[22]报道的L.paracasei ZFM54的结果(68.54±11.32)%相似。其中CD12-1的清除率最高(72.17%),显著高于LS5-2和KS1-2(P<0.05),表现出更强的自由基清除能力。
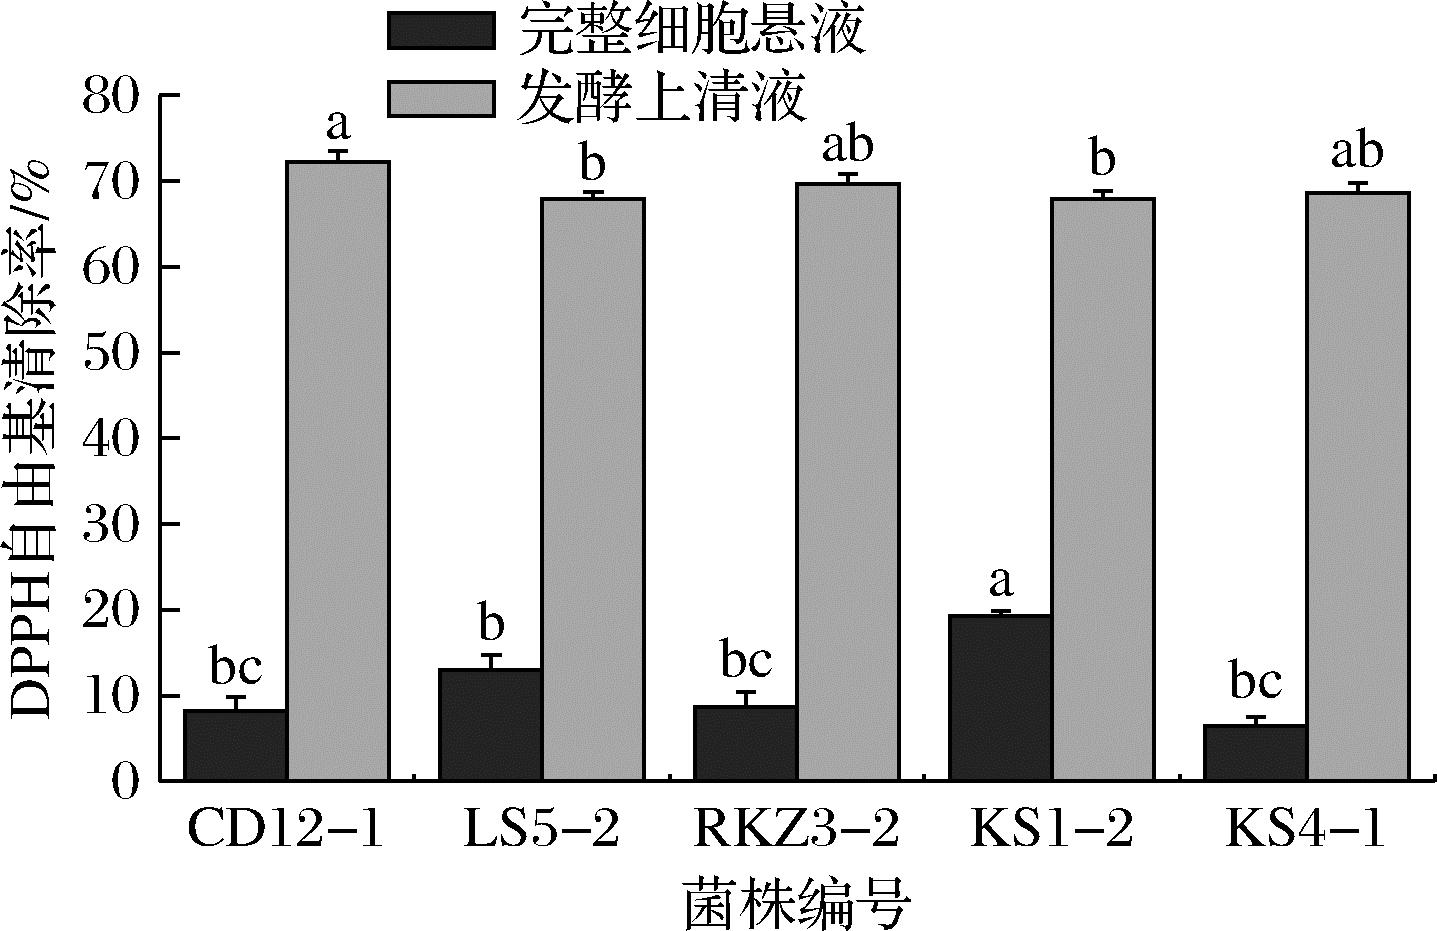
图2 五株乳酸菌菌悬液及发酵上清液对DPPH自由基的清除率
Fig.2 Scavenging rate of DPPH free radicals by 5 strains of lactic acid bacteria intact cell and cell-free extracs
2.6 安全性评价
2.6.1 抗生素敏感
随着乳酸菌应用的不断扩大,其安全性逐渐成为关注焦点。本试验采用纸片扩散法评估了菌株CD12-1的耐药性。结果表明,CD12-1对青霉素、氯霉素、红霉素、四环素及头孢唑啉均表现为敏感,对庆大霉素和环丙沙星呈中度敏感,仅对链霉素表现为耐药(如附表3所示)。这与前期研究一致,多数LAB菌株对四环素、青霉素和氯霉素敏感,而对氨基糖苷类(链霉素、庆大霉素)和糖肽类(万古霉素)具有固有耐药性[25]。综合分析,除链霉素外,CD12-1未表现出明显的耐药性,表明该菌株具有较好的安全性。
2.6.2 溶血能力
根据在绵羊血琼脂平板上的溶血表现,可将菌株分为完全溶血(β-溶血,产生明显透明环)、部分溶血(α-溶血,呈草绿色半透明环)和非溶血(γ-溶血,无溶血环)。如图3所示,平板中心的对照菌株(金黄色葡萄球菌)产生典型的透明溶血环,而周围的试验菌株CD12-1未见溶血环,表现为γ-溶血型,表明其无溶血活性,安全性较高。
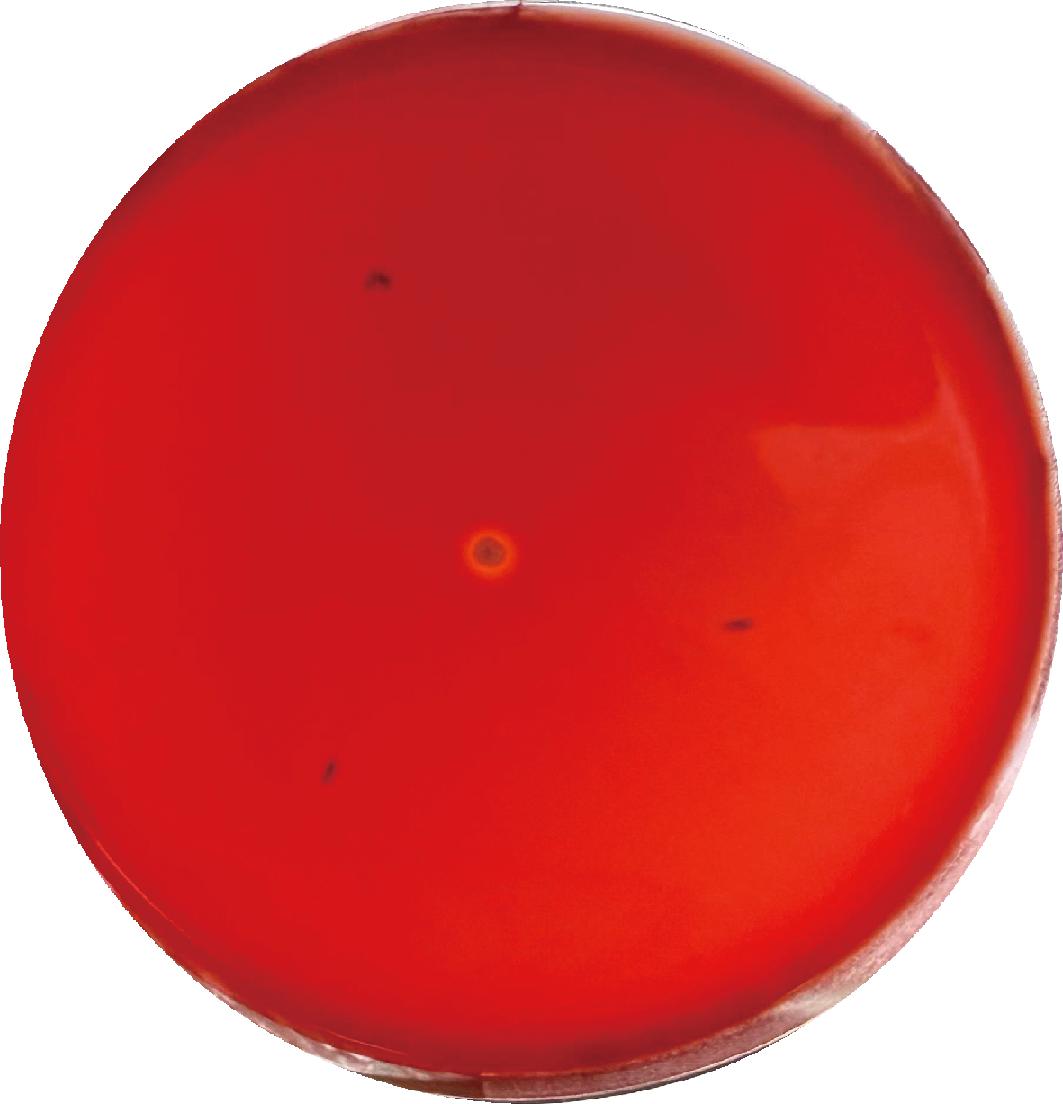
图3 CD12-1的溶血情况
Fig.3 Assessment of hemolytic activity of strain CD12-1
2.7 全基因组分析
2.7.1 L.paracasei CD12-1的全基因组测序及分析
基于16S rRNA基因序列比对结果,菌株CD12-1与NCBI数据库中L. paracasei的序列同源性高达100%,因此被鉴定为L.paracasei。
基因组组装结果显示,L.paracasei CD12-1包含1个环状染色体(2 942 996 bp)(图4-a)和3个环状质粒:质粒1(57 796 bp)、质粒2(8 424 bp)和质粒3(8 089 bp)。根据Ochman和Davalos对细菌基因组大小的划分[26],CD12-1的基因组长度为2 868 687 bp,为中等大小,这类微生物通常具备较强的代谢能力和环境耐受性[27]。GC含量为46.5%,共预测到2 844个蛋白质编码基因,平均基因长度为873.33 bp,基因序列GC含量为47.18%。为进一步评估L.paracasei CD12-1的基因组特征,将其与L.paracasei Zhang进行比较。L.paracasei Zhang是从内蒙古自治区锡林郭勒盟草原传统发酵酸马奶中分离得到的一株具有益生特性的乳酸菌,已被证实具有多种益生菌相关基因和特性[28]。L.paracasei Zhang基因组大小为2 898 456 bp,GC含量为46.45%,预测基因数量为2 705。尽管二者的来源不同,且在基因组大小、GC含量和预测基因数量上存在细微差异,但在与益生功能相关的基因分布上高度相似,进一步证明了它们具有相似的代谢能力和功能特性。这些相似性支持了L.paracasei CD12-1作为潜在益生菌候选菌株在代谢能力和环境适应性方面的潜力。
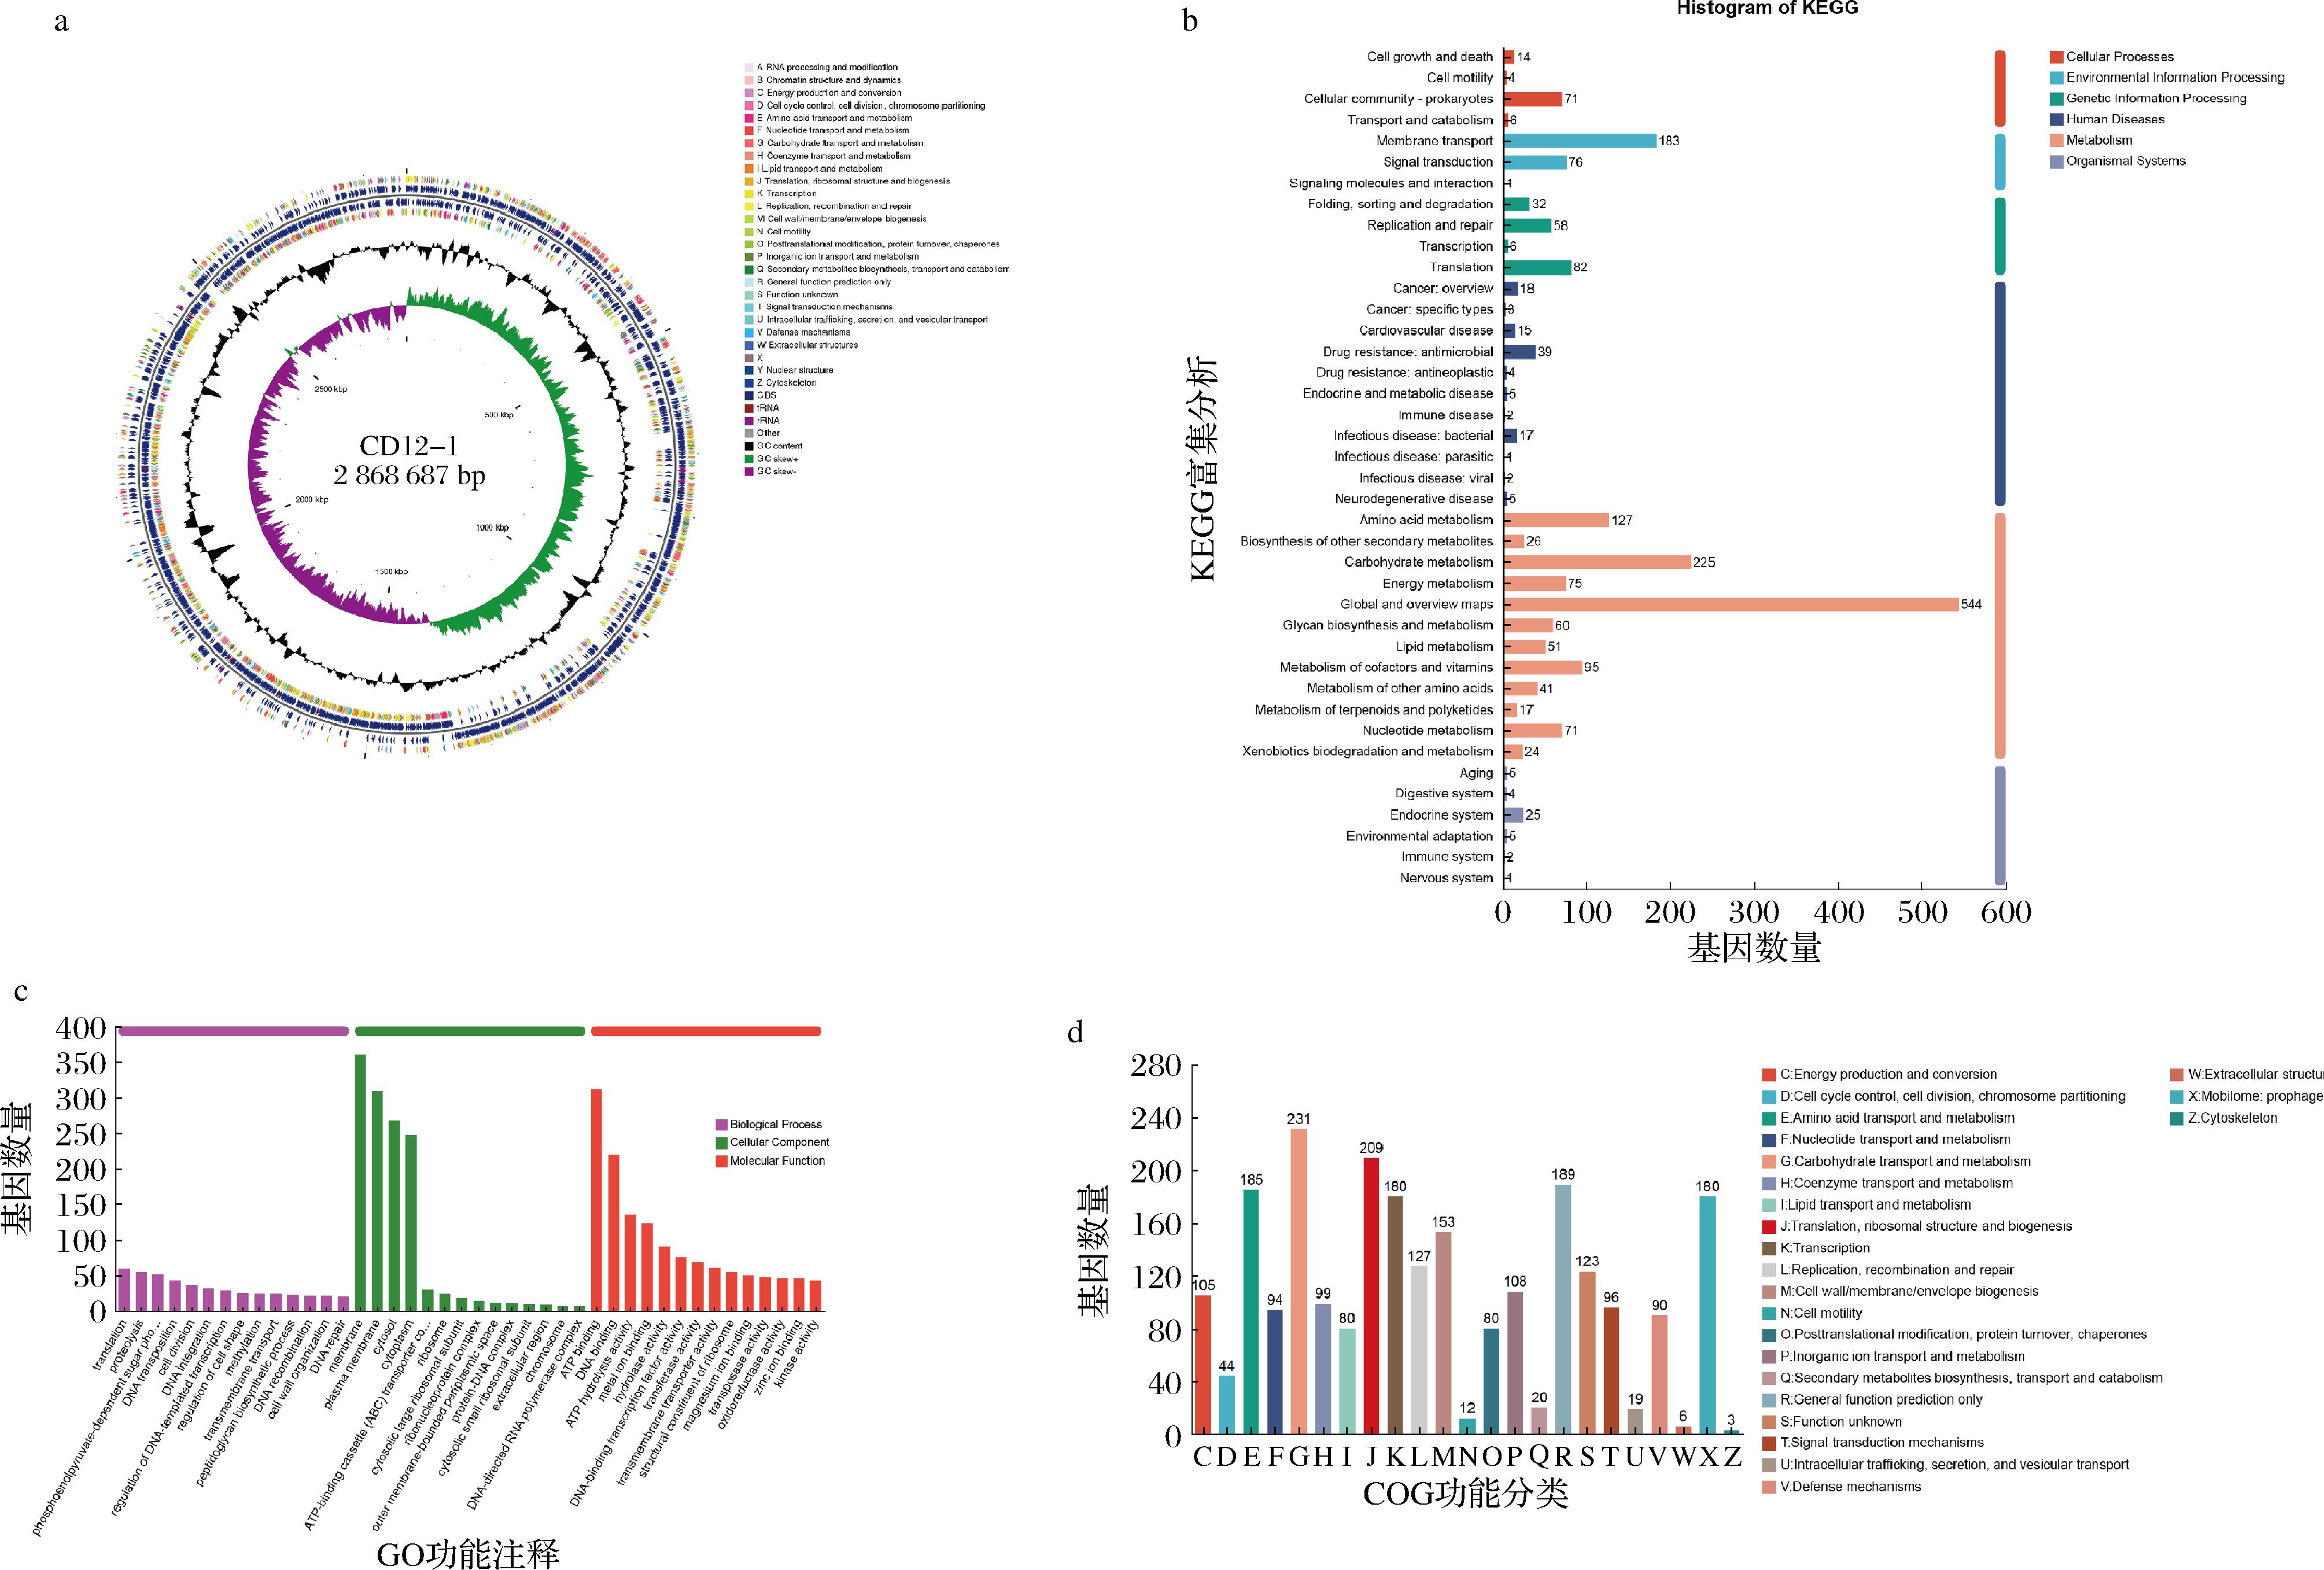
a-L.paracasei CD12-1的完整环形基因组图谱;b-京都基因和KEGG途径富集;c-GO分析;d-COG功能分类
图4 L.paracasei CD12-1的完整环形基因组图谱、京都基因和KEGG途径富集、GO分析、COG功能分类
Fig.4 Complete circular genome map of L.paracasei CD12-1, KEGG pathways enrichment, GO analysis, and COG functional classification
此外,非编码RNA预测结果表明,该基因组含有60个tRNA、15个rRNA(包括5个5S rRNA、5个16S rRNA和5个23S rRNA拷贝)以及37个sRNA。
2.7.2 全基因组基因预测及功能注释
在KEGG功能注释分析中,CD12-1基因组共注释到1 991个基因,并可归入6类代谢途径(图4-b)。其中,1 356个基因参与代谢过程;260个基因与环境信息处理相关,其中76个基因涉及信号转导;183个基因与膜转运相关;178个基因参与遗传信息处理;95个基因与细胞过程相关;111个基因与人类疾病相关;42个基因作用于生物系统。功能基因分析表明,部分功能基因与益生特性密切相关:dlt、sfcA、ldhA和clp家族基因与酸和胆盐耐受有关,Fbp3促进黏附定植,MAPK与NOD通路可能参与抗氧化应答,dltD基因表明其可能具备拮抗金黄色葡萄球菌的潜力。这些结果为其作为益生菌的应用提供了基因组学依据。
基于GO数据库,基因功能被划分细胞组分(cell components,CC)、分子功能(molecular function,MF)和生物学过程(biological process,BP)3个主要领域。结果显示,1 116个基因被注释到生物学过程,主要涉及代谢过程、细胞过程及单个生物体过程,表明该菌株具备较强的代谢调控和细胞活动能力。1 323个基因注释在细胞组分,主要集中于细胞膜和细胞结构相关功能。分子功能领域注释的基因最多,共1 676个,主要与催化活性、结合功能和转运活性相关,进一步证明该菌株在物质代谢与环境适应方面具有潜在优势(图4-c)。
COG功能注释结果显示,L.paracasei CD12-1基因组共注释到2 208个基因,主要富集于氨基酸代谢与转运[E]、碳水化合物代谢与转运[G]、翻译[J]、转录[K]以及细胞壁/膜/被膜生物合成[M]等功能类别。这表明该菌株具备较强的营养物质利用与代谢潜力,能够高效利用氨基酸和碳水化合物,并合成乳酸和短链脂肪酸等代谢产物。同时,翻译与转录相关基因的富集结果表明其具备较强的蛋白合成与基因调控能力,有助于在不同环境下维持功能表达。细胞壁/膜/被膜合成相关基因可能增强其在酸、胆盐等应激条件下的存活力,促进黏附、免疫调控及屏障功能改善。总体而言,该菌株在代谢活性、环境适应性和益生潜力方面均表现出优势,为其作为益生菌的应用提供了基因组学支撑(图4-d)。
在COG和KEGG功能注释分析中,发现与碳水化合物降解和合成相关的基因在调控网络中占据显著地位,强调了其在代谢活动中的关键作用。碳水化合物代谢和膜转运相关基因的数量尤为突出,进一步表明该菌株在糖类摄取、转运及代谢方面具备强大的功能潜力。
2.7.3 L.paracasei CD12-1体外益生功能基因分析
2.7.3.1 抗逆性相关基因分析
结果表明,L.paracasei CD12-1基因组中鉴定到多类与环境适应相关的基因(如附表4所示)。耐酸相关基因为ATP合成酶亚基。该系统通过质子转运维持胞内外pH平衡,在酸胁迫下主动排出过量质子,提升耐酸性。与体外试验结果相呼应,L.paracasei CD12-1在pH值为3的酸性环境下表现出较高的存活率(73.34%),进一步验证了其较强的耐酸能力。
耐胆盐相关基因为无机焦磷酸酶。但基因组缺乏胆汁盐水解酶基因(bile salt hydrolase,BSH)。BSH被认为是乳酸菌胆盐耐受性的关键因子[29]。已有研究表明,携带BSH的乳酸菌在相同条件下存活率和定植能力显著高于缺失该基因的菌株[30]。体外试验中CD12-1菌株在胆盐环境下存活率较低(37.43%),可能主要归因于缺乏BSH基因。
冷应激相关基因为冷休克蛋白CspC;热应激相关基因包括热休克蛋白HslO、CtsR和HSP20,以及分子伴侣GroEL、GroES。此外,还注释到碱性休克蛋白(Asp23)家族,这些基因和分子伴侣的存在帮助菌株在环境变化时实现快速响应。
2.7.3.2 黏附相关基因分析
与黏附相关的基因包括细胞壁合成与修饰蛋白、LTA合成酶、膜蛋白、延伸因子EF-Tu、G和P。这些基因可能为L.paracasei CD12-1提供了多层次的黏附机制,帮助其在宿主肠道中稳定定植并发挥益生效应。该结果与体外试验一致,CD12-1在体外自聚集率为91.19%,表面疏水性为82.97%,进一步支持了其良好的黏附能力。
2.7.3.3 抗氧化相关基因分析
与抗氧化相关的基因包括FAD-依赖氧化还原酶、谷胱甘肽过氧化物酶、过氧化物还原酶、硫氧还蛋白二硫化物还原酶、肽-甲硫氨酸(R)-S-氧化物还原酶以及过氧化应激蛋白YaaA。同时,还检测到EpsG family protein编码基因,其可能通过胞外多糖的合成与分泌积累多肽、氨基酸、有机酸等功能性代谢产物,增强抗氧化作用。这些代谢产物可能间接提高了乳酸菌发酵上清液的抗氧化活性,与体外试验中上清液DPPH自由基清除率(72.17%)高于完整细胞悬液的结果一致,进一步证明了其良好的抗氧化能力。
2.7.3.4 抑菌相关基因分析
与抑菌活性相关的基因包括乳酸脱氢酶、D-2-羟基酸乳酸脱氢酶及细菌素编码基因。同时,还注释到PlnI免疫蛋白,它在细菌素的产生和自我保护中发挥关键作用。PlnI的存在为L.paracasei CD12-1提供了重要的免疫保护,进一步支持其作为益生菌应用的潜力。
2.7.4 毒力因子和抗生素抗性基因分析
通过将L.paracasei CD12-1蛋白序列与VFDB数据库比对,鉴定出251个推定的毒力因子基因,这些基因同源性从19.3%到70.1%。其中10个毒力因子的同源性超过60%。进一步结合KEGG和COG数据库的功能注释结果发现,这10个潜在的毒力基因主要参与基本代谢过程(附表5),而非与毒力直接相关的通路。此外,基因组注释未发现典型致病菌常见的侵袭性毒力因子基因,包括明胶酶(GelE)、透明质酸酶(Hyl)、肠球菌表面蛋白(Esp)、胶原黏附(Ace)、溶血素(Hbl)和细胞毒素K以及非溶血性肠毒素(Nhe)和呕吐毒素。
(Cereulide-Ces)将L.paracasei CD12-1的基因数据与CARD数据库进行比对后,注释到VanL、Erm(K)和TetA等耐药基因,这些基因通常与万古霉素、大环内酯类和四环素类抗生素的耐药性相关。然而,VanL与VanA或VanM簇不同,仅赋予低水平的万古霉素耐药性[31]。有研究表明,乳酸菌通过质粒传递耐药基因,存在质粒中的抗性基因可能会随着消费者食用乳酸菌制品转移至人体肠道,存在潜在的安全风险[32]。尽管基因组数据中检测到与四环素和红霉素抗性相关的基因,但这些基因全部位于染色体上,提示其发生水平转移的风险较低,且基因序列一致性均低于60%,这可能导致未能准确反映预测中的耐药性。
据报道,Erm基因簇常通过插入元件整合到染色体中,这种整合常伴随着启动子区域的重排或缺失[33]。没有启动子,RNA聚合酶无法识别并转录该基因,导致没有耐药蛋白生成。此外,即使基因被转录并翻译成蛋白,若蛋白折叠错误或被宿主蛋白酶(如ClpP酶系统)降解,也会导致功能丧失。全基因组分析中注释到ClpP酶系统,作为调控抗生素耐药性的关键“分子剪刀”,ClpP复合物在抗生素胁迫下激活并降解耐药基因的转录因子,从而抑制耐药通路[34];同时,MRS培养基具有较强的缓冲能力,且乳酸菌在培养过程中产酸迅速,这可能影响抗生素的稳定性及细胞膜通透性,从而在一定程度上干扰抗生素敏感性试验的结果,使菌株在四环素和红霉素检测中表现出较高的敏感性。
3 结论与讨论
本研究从新疆和西藏各牧区的传统发酵牦牛乳中,通过传统培养法分离获得一株益生特性良好的副干酪乳酪杆菌(L.paracasei CD12-1)。体外试验显示,该菌株具有良好的耐酸性、耐人工胃肠液能力、黏附能力及抗氧化潜力,同时对大部分抗生素敏感且无溶血性,表明其具有较好的益生潜力。
通过Illumina与PacBio Sequel双平台联合测序对该菌株进行全基因组测序与组装,获得了完整度高、连续性好的高质量基因组数据,为后续菌株功能解析及安全性评价奠定了坚实的数据基础。全基因组分析结果显示,L.paracasei CD12-1拥有1个环状染色体和3个环状质粒,共2 844个编码基因。COG、GO和KEGG分析显示,基因组富含与碳水化合物代谢和膜转运相关的基因,并携带与耐酸、黏附、抗氧化等相关的基因簇,从整体上为其潜在益生特性提供了基因组层面的支持。然而,基因型与表型之间并非完全一致,部分体外表型结果尚未在基因组注释中获得直接对应解释。尽管全基因组测序未检测到典型BSH基因,提示该菌株可能缺乏直接的胆盐水解能力,但其在人工肠液条件下仍表现出较高存活率。这一现象可能与人工肠液中缓冲体系(如磷酸盐、黏液素等)降低胆盐毒性,或与膜结构调控、转运系统及全局应激响应机制等非经典耐受途径有关,反映了胆盐耐受表型受多基因协同调控及环境因素共同影响的复杂特性。后续可通过基因敲除或功能互补实验进一步验证其分子机制。在安全性方面,L.paracasei CD12-1中检测到的耐药基因序列一致性较低,且未发现高相似性的已知细胞毒力因子,提示其具有较高的遗传安全性。
尽管体外试验和基因组分析均显示了良好的益生潜力和安全性,但单独依赖其中任何一种方法仍存在局限性。体外试验主要反映菌株在特定条件下的表型,难以全面揭示其遗传背景及潜在功能稳定性,尤其无法准确识别耐药基因、毒力因子或可移动遗传元件;而全基因组分析则主要停留在理论预测层面,基因功能的发挥又受到环境因素与表达调控影响,难以完全反映菌株的实际表型。因此,本研究将体外益生评价与全基因组分析相结合,通过系统的基因注释与功能富集分析,精准识别并定位支撑益生表型的关键功能基因及相关基因簇,并进行了系统性的安全性评估,为后续体内应用的安全性验证和功能开发提供了可靠依据。
综上,L.paracasei CD12-1展示了良好的益生潜力和遗传安全性,具备良好的应用前景。然而,其益生作用机制,尤其是胆盐耐受的分子基础及长期应用安全性,仍需在后续研究中进一步系统阐明。
[1] Makharia G, Gibson P R, Bai J C, et al.World gastroenterology organisation global guidelines:diet and the gut[J].Journal of Clinical Gastroenterology, 2022, 56(1):1-15.
[2] Parvez S, Malik K A, Kang S A, et al.Probiotics and their fermented food products are beneficial for health[J].Journal of Applied Microbiology, 2006, 100(6):1171-1185.
[3] 徐成勇, 郭本恒, 吴昊, 等.酸奶发酵剂和乳酸菌生物技术育种[J].中国生物工程杂志, 2004, 24(7):55-59.Xu C Y, Guo B H, Wu H.Advance in both starter cultures in yoghurt and breeding of lactic acid bacteria by biotechnology[J].China Biotechnology, 2004, 24(7):55-59.
[4] Zhou B L, Yuan Y T, Zhang S S, et al.Intestinal flora and disease mutually shape the regional immune system in the intestinal tract[J].Frontiers in Immunology, 2020, 11:575.
[5] Dahiya D, Nigam P S.The gut microbiota influenced by the intake of probiotics and functional foods with prebiotics can sustain wellness and alleviate certain ailments like gut-Inflammation and colon-cancer[J].Microorganisms, 2022, 10(3):665.
[6] Cotter P D, Hill C, Ross R P.Bacteriocins:Developing innate immunity for food[J].Nature Reviews Microbiology, 2005, 3(10):777-788.
[7] Sanders M E, Merenstein D J, Reid G, et al.Probiotics and prebiotics in intestinal health and disease:From biology to the clinic[J].Nature Reviews Gastroenterology &Hepatology, 2019, 16(10):605-616.
[8] Peng X Q, Ed-Dra A, Yue M.Whole genome sequencing for the risk assessment of probiotic lactic acid bacteria[J].Critical Reviews in Food Science and Nutrition, 2023, 63(32):11244-11262.
[9] Fan Y Q, Ma Z H, Wei B L, et al.Revealing the potent probiotic properties and alcohol degradation capabilities of Lactiplantibacillus plantarum BGI-J9 by combining complete genomic and phenotypic analysis[J].Frontiers in Microbiology, 2025, 16:1664033.
[10] Li M, Wang Y, Cui H Y, et al.Characterization of lactic acid bacteria isolated from the gastrointestinal tract of a wild boar as potential probiotics[J].Frontiers in Veterinary Science, 2020, 7:49.
[11] Nami Y, Bakhshayesh R V, Jalaly H M, et al.Probiotic properties of Enterococcus isolated from artisanal dairy products[J].Frontiers in Microbiology, 2019, 10:300.
[12] Liu W J, Chen M X, Duo L N, et al.Characterization of potentially probiotic lactic acid bacteria and bifidobacteria isolated from human colostrum[J].Journal of Dairy Science, 2020, 103(5):4013-4025.
[13] 郑娟善. 牦牛与犏牛乳源乳酸菌基因组特征及L.rhamnosus CY12重塑肠道屏障功能的作用机制[D].杨凌:西北农林科技大学, 2024.Zheng J S.Population and functional genomics of lactic acid bacteria and the mechanism of L.rhamnosus CY12 remodeling intestinal barrier function in yak and cattle-yak milk[D].Yangling:Northwest A&F University, 2024.
[14] Li S Y, Zhao Y J, Zhang L, et al.Antioxidant activity of Lactobacillus plantarum strains isolated from traditional Chinese fermented foods[J].Food Chemistry, 2012, 135(3):1914-1919.
[15] Cheon M J, Lim S M, Lee N K, et al.Probiotic properties and neuroprotective effects of Lactobacillus buchneri KU 200793 isolated from Korean fermented foods[J].International Journal of Molecular Sciences, 2020, 21(4):1227.
[16] 郑柳青, 刘冬梅, 张馨月, 等.鼠李糖乳杆菌LR-ZB1107-01的安全性评价及其益生特性初步研究[J].食品工业科技, 2020, 41(11):111-116.Zheng L Q, Liu Y M, Zhang X Y, et al.Assessment of safety and probiotic characteristics of Lactobacillus rhamnosus ZB1107-01[J].Science and Technology of Food Industry, 2020, 41(11):111-116.
[17] Liu B H, Zhong X X, Liu Z Y, et al.Probiotic potential and safety assessment of Lactiplantibacillus plantarum cqf-43 and whole-genome sequence analysis[J].International Journal of Molecular Sciences, 2023, 24(24):17570.
[18] 杨靖, 管军军, 崔耀明, 等.益生菌在肠道的定植机制研究进展[J].中国畜牧杂志, 2025, 61(2):82-88;98.Yang J, Guan J J, Cui Y M, et al.Research progress on the colonization mechanism of probiotics in intestinal tract[J].Chinese Journal of Animal Science, 2025, 61(2):82-88;98.
[19] 徐超, 章绍兵, 孟珺, 等.不同乳酸菌抗氧化作用和胆固醇降解能力的初步研究[J].食品与发酵工业, 2023, 49(2):152-158;165.Xu C, Zhang S B, Meng J, et al.A preliminary study of the antioxidant effects and cholesterol degradation capacity of different lactic acid bacteria[J].Food and Fermentation Industries, 2023, 49(2):152-158;165.
[20] 张和平, 孟和毕力格, 王俊国, 等.分离自内蒙古传统发酵酸马奶中L.casei Zhang潜在益生特性的研究[J].中国乳品工业, 2006(4):4-10.Zhang H P, Meng H B L G, Wang J G, et al.Assessment of potential probiotic properties of L.casei Zhang strain isolated from traditionally home-made Koumiss in Inner Mongolia of China[J].China Dairy Industry, 2006(4):4-10.
[21] 张素平, 林晓颖, 徐明超, 等.棒状腐败乳杆菌Lc7的生物学特性及益生作用[J].微生物学报, 2023, 63(1):319-332.Zhang S P, Lin X Y, Xu M C, et al.Biological characteristics and probiotic effect of Loigolactobacillus coryniformis Lc7[J].Acta Microbiologica Sinica, 2023, 63(1):319-332.
[22] Qureshi N, Gu Q, Li P.Whole genome sequence analysis and in vitro probiotic characteristics of a Lactobacillus strain Lactobacillus paracasei ZFM54[J].Journal of Applied Microbiology, 2020, 129(2):422-433.
[23] 韦献雅, 殷丽琴, 钟成 等.DPPH法评价抗氧化活性研究进展[J].食品科学, 2014, 35(9):317-322.Wei X Y, Yin L Q, Zhong C, et al.Advances in the DPPH radical scavenging assay for antioxidant activity evaluation[J].Food Science, 2014, 35(9):317-322.
[24] 杨旭洲, 陈佩瑶, 张富新.抗氧化乳酸菌的筛选及其益生特性评价[J].食品与发酵工业, 2023, 49(10):17-23.Yang X Z, Chen P Y, Zhang F X.Screening of antioxidant lactic acid bacteria and evaluation of their probiotic properties[J].Food and Fermentation Industries, 2023, 49(10):17-23.
[25] Anisimova E, Gorokhova I, Karimullina G, et al.Alarming antibiotic resistance of Lactobacilli isolated from probiotic preparations and dietary supplements[J].Antibiotics, 2022, 11(11):1557.
[26] Ochman H, Davalos L M.The nature and dynamics of bacterial genomes[J].Science, 2006, 311(5768):1730-1733.
[27] Ranea J A G, Buchan D W A, Thornton J M, et al.Evolution of protein superfamilies and bacterial genome size[J].Journal of Molecular Biology, 2004, 336(4):871-887.
[28] 孟和毕力格, 乌日娜, 王立平 等.不同地区酸马奶中乳杆菌的分离及其生物学特性的研究[J].中国乳品工业, 2004(11):6-11.Meng H B L G, Wu R N, Wang L P, et al.Isolation and identification of Lactobacillus from koumiss collected in Inner Mongolia and People’s Republic of Mongolia[J].China Dairy Industry, 2004(11):6-11.
[29] Prete R, Long S L, Gallardo A L, et al.Beneficial bile acid metabolism from Lactobacillus plantarum of food origin[J].Scientific Reports, 2020, 10(1):1165.
[30] Ruiz L, Margolless A, Sanchez B.Bile resistance mechanisms in Lactobacillus and Bifidobacterium[J].Frontiers in Microbiology, 2013, 4:396.
[31] Lebreton F, Depardieu F, Bourdon N, et al.D-Ala-d-Ser VanN-type transferable vancomycin resistance in Enterococcus faecium[J].Antimicrobial Agents and Chemotherapy, 2011, 55(10):4606-4612.
[32] Koutsoumanis K, Allende A, Alvarez-Or-Donez A, et al.Role played by the environment in the emergence and spread of antimicrobial resistance(AMR)through the food chain[J].EFSA Journal, 2021, 19(6):6651.
[33] Florez A B, Ammor M S, Delgado S, et al.Molecular analysis of a chromosome-carried erm(B) gene and its flanking insertion points in Lactobacillus johnsonii G41[J].Antimicrobial Agents and Chemotherapy, 2007, 50(12):4189-4190.
[34] Janine K, Anja H, Hauke L, et al.The antibiotic ADEP reprogrammes ClpP, switching it from a regulated to an uncontrolled protease[J].EMBO Molecular Medicine, 2009, 1(1):37-49.