食物过敏是由食物中致敏蛋白引发的异常免疫反应,表现为免疫系统对食物中营养成分的病理性应答[1]。根据免疫机制不同,食物过敏可分IgE与非IgE介导型两类。IgE介导型由食物蛋白与特异性IgE抗体结合触发I型超敏反应,属于速发性,常见症状包括皮肤瘙痒、呼吸道症状甚至休克[2];非IgE介导型由免疫系统其他组分引起,多为迟发型,表现为胃肠道症状等[3]。全球范围内,食品过敏发生率呈持续上升趋势,据报道,约15%的成年人和18%的儿童受到食物过敏的影响,使其成为一个备受关注的公共卫生问题[4]。目前国际公认的食源性过敏原包括小麦、大豆、牛乳、花生、坚果、鸡蛋、鱼类以及甲壳类(图1)[5]。值得注意的是,自2023年起,美国等多个国家已将芝麻列为第九大食物过敏原,并纳入食品标签强制标识范围[6]。
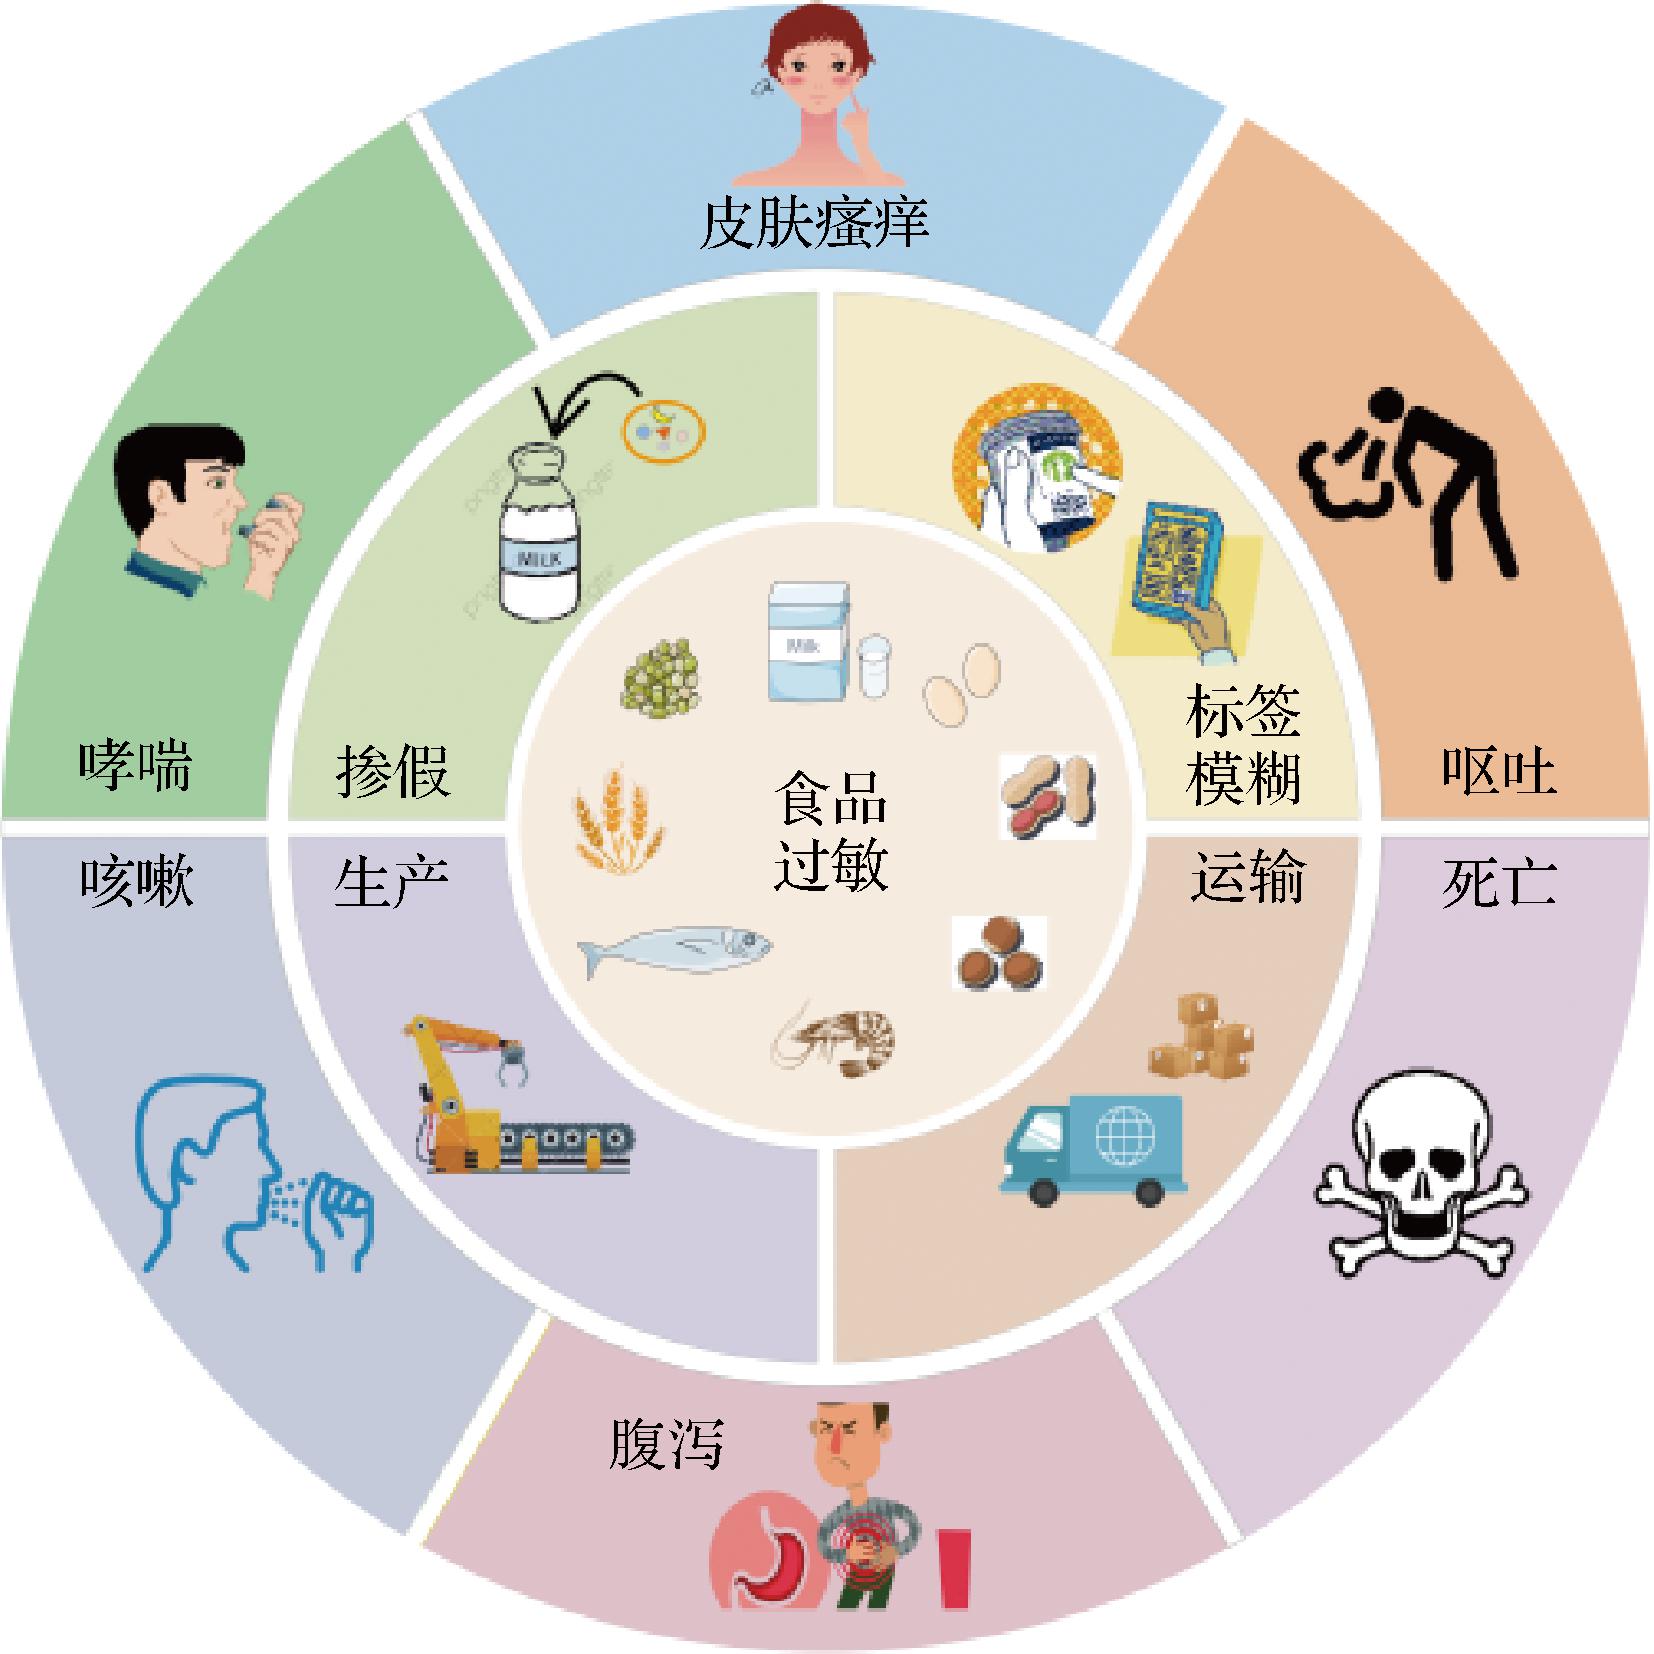
图1 食品过敏原以及过敏症状
Fig.1 Food allergens and allergic symptoms
食品过敏原的监管与检测是食品安全控制的重要环节。多个国家和地区已建立相应的过敏原标签制度,如美国《食品现代化法案》[7]、欧盟《食品标示法规》[8]以及中国《预包装食品标签通则》[9]。然而,由于国际间监管标准存在差异,加上食品供应链中复杂的加工、运输及储存环节导致交叉污染与非故意掺入[10],现有标签制度仍难以全面防控过敏风险[11]。尽管已有部分化学、物理及生物技术被用于降低某些过敏原的致敏性[12],但目前完全避免摄入仍是预防过敏反应最有效的策略。因此,开发高灵敏、高可靠性的过敏原检测技术势在必行。
当前,食源性过敏原的常用检测方法主要包括色谱技术、DNA分析及免疫分析方法。色谱法(如HPLC/超高效液相色谱)[13]尽管具备高灵敏度,但设备成本高、操作复杂且耗时较长,限制了其广泛应用。基于DNA的检测技术(如PCR)[14]虽具有高灵敏度和高通量性,但易因不同来源DNA交叉反应导致假阳性,且仅适用于含DNA基质,应用范围受限[15]。免疫分析法,如酶联免疫吸附测定(enzyme-linked immunosorbent assay, ELISA)[16]和侧向流动免疫分析(lateral flow immunoassay, LFIA)[17],因操作简便,样品需求量少及适用性广而成为主流被广泛采用。然而,这些方法普遍依赖传统单克隆抗体(monoclonal antibody, mAb)或多克隆抗体(polyclonal antibody, pAb),其识别性能受限于对靶蛋白表位的可及性与构象稳定性。食品加工过程中的热变性,蛋白酶解及基质干扰等因素常导致抗体结合能力下降,进而引起检测灵敏度低、交叉反应性强及重复性差等问题[18-19]。此外,传统抗体在复杂食品体系中的适应性不足,也难以实现高通量与现场快速检测[20]。因此,开发新型识别元件已成为突破当前技术瓶颈的关键研究方向。
纳米抗体(nanobody, Nb)作为一种具有广阔应用前景的识别分子,自1993年Hamers-Casterman等[21]在驼科动物中发现重链抗体(heavy-chain antibody, HCAb)以来,其研究与应用不断深入。Nb是由重链抗体可变区(variable domain of heavy chain antibody, VHH)通过基因工程制备而成的单域抗体,分子尺寸为2.5 nm×4 nm×3 nm,是目前已知最小的抗原结合片段[22]。与常规抗体相比,Nb具有分子质量小、亲和力高、稳定性强、溶解性高、组织渗透性高、易于基因工程改造等突出优点。其独特的结构特征使其能够识别常规抗体难以触及的抗原表位,甚至在高温、极端pH及变性条件下仍保持结合活性[23-24],因而在复杂食品基质及加工食品的过敏原检测中展现出显著优势。本文将系统综述Nb的分子特性及其在食源性过敏原检测中的最新应用进展,重点讨论其在提升灵敏度、特异性和稳定性方面的基质与性能表现,并展望该领域的未来发展方向,以期为开发新一代过敏原检测技术提供理论依据和技术参考。
1 Nb的优势
1.1 分子质量小,组织渗透性高
Nb分子质量约为12~15 kDa,仅为常规IgG的1/10[25](图2),其小尺寸赋予其优异的组织渗透性。其次,VHH的FR2区域与常规重链可变区(variable region of heavy chain,VH)结构域存在关键差异:其疏水性氨基酸(V42、G49、L50和W52)被亲水性氨基酸(F42、E49、R50和G52)所取代,显著提升了溶解性,这些特性使Nb能更易接近过敏蛋白内部,快速识别隐蔽表位[26]。Freitas等[27]基于mAb建立的夹心免疫分析法检测花生过敏原Ara h 1,检测限(limit of detection, LOD)为5.2 ng/mL;而Hu等[28]开发基于Nb的电化学免疫传感器,其LOD可达0.86 ng/mL,显示出更高的灵敏度,这表明Nb能够更有效地识别并结合过敏蛋白Ara h 1的表位,为构建高灵敏度免疫检测方法提供了重要基础。
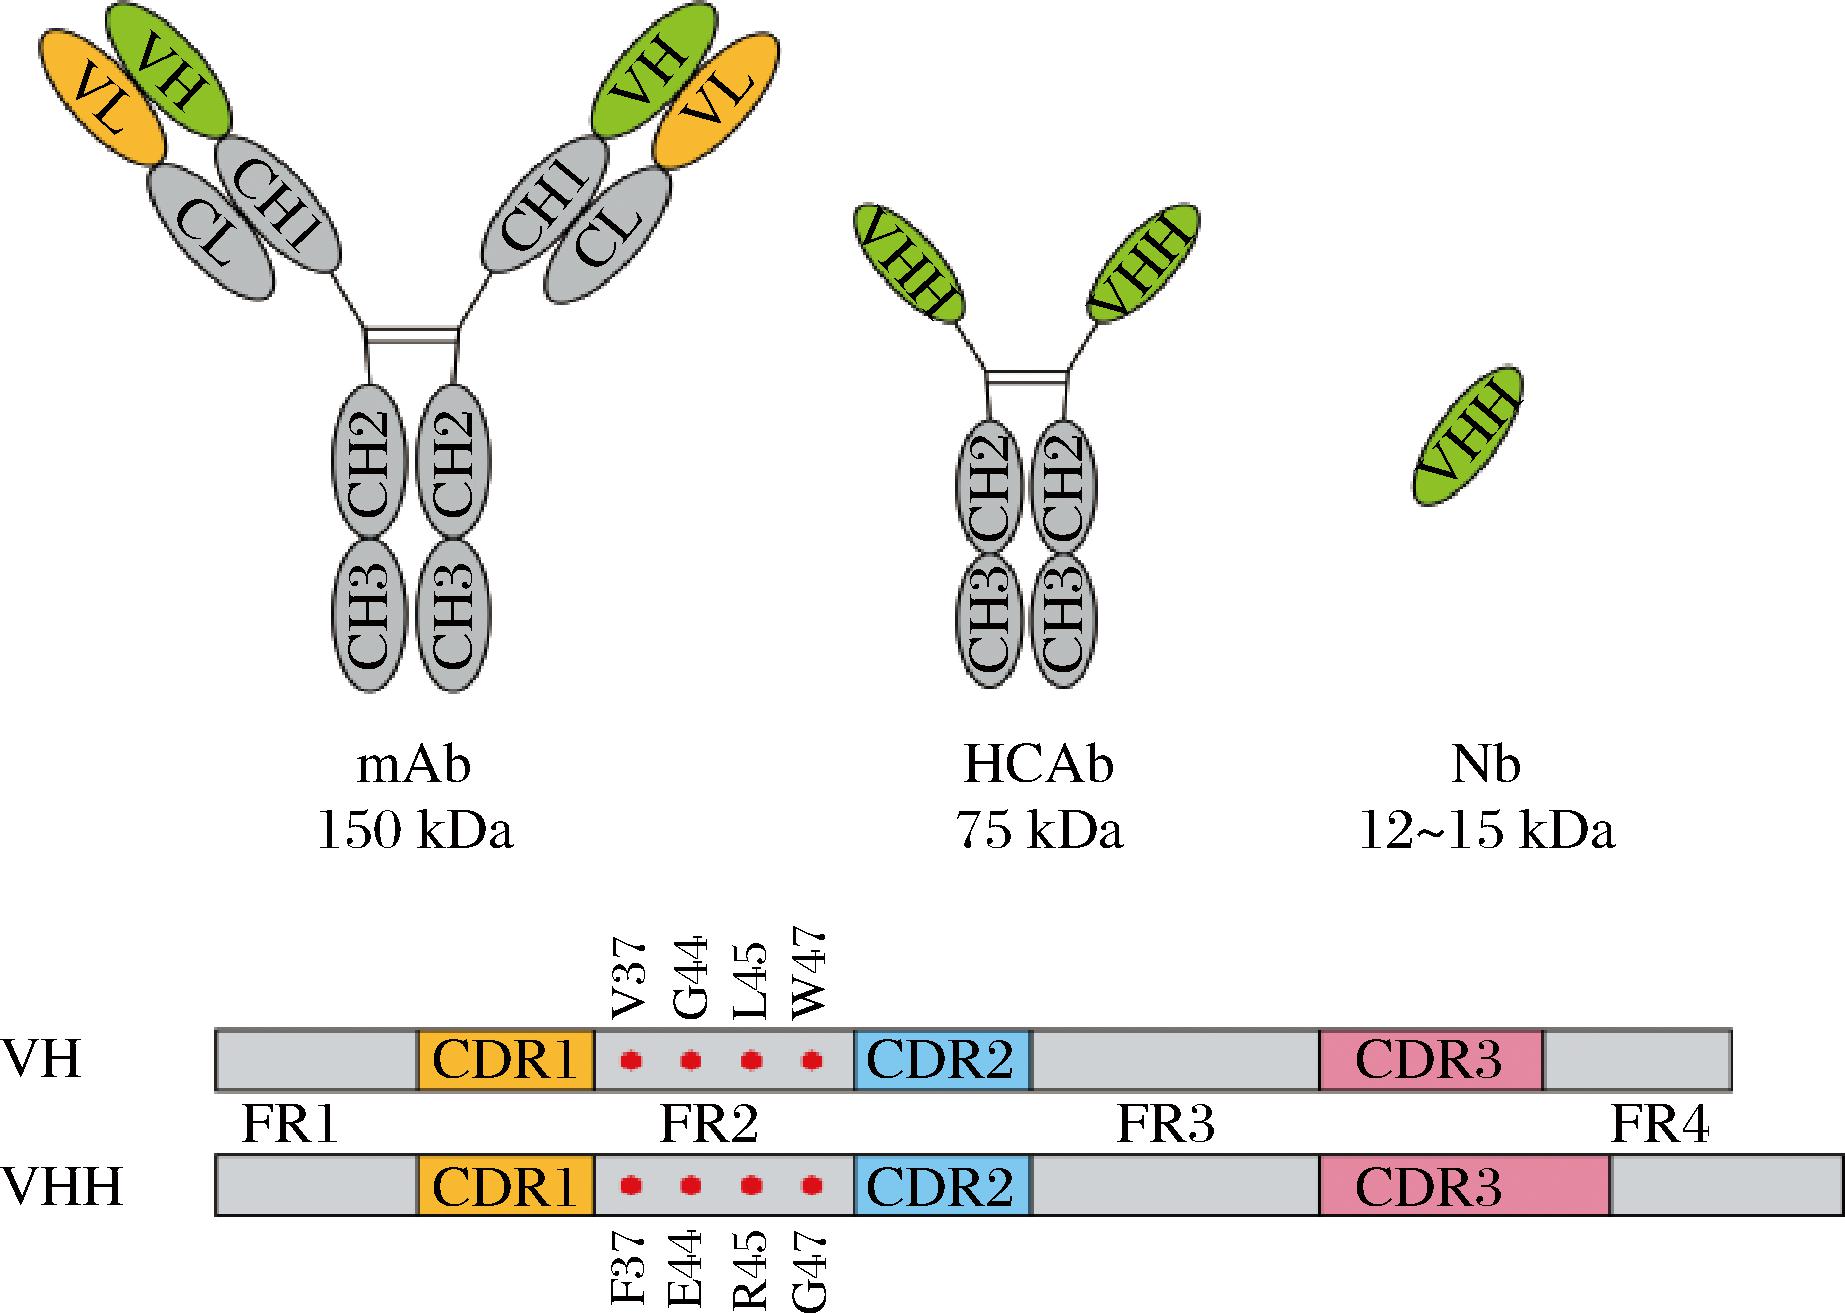
图2 传统抗体、HCAbs和Nbs结构示意图
Fig.2 Schematic diagram of conventional antibodies, HCAbs, and Nbs
1.2 独特表位,亲和力高
Nb虽与传统抗体VH结构域相似,包含4个保守的框架区(framework region, FR)和3个互补决定区(complementarity determiningregion, CDR)[29],但其CDR3区更长且具有独特的凸状结构,使其能够形成更为灵活的表位识别结构,能够识别传统mAb难以接近甚至隐藏的表位[30-31]。这一结构特性不仅赋予其更高亲和力(常达pmol/L~nmol/L级别)[30],还显著降低了食品基质中相似蛋白引起的交叉反应[32]。即使在食品高温加工导致蛋白变性的情况下,Nb仍可识别残留片段或展开表位,展现出优于常规抗体的适应性[33]。研究表明,Nb倾向于识别构象或独特表位,而传统抗体则倾向于结合线性或表面表位。例如,Li等[34]利用β-乳球蛋白(β-lactoglobulin, β-LG)的Nb与mAb构建夹心ELISA(sandwich ELISA, sELISA)方法,发现Nb对天然和热变性β-LG(105 ℃热处理)均有良好的识别能力,说明其可结合在变性过程中暴露的内部表位[35];mAb则识别β-LG的其他表位。这种差异一方面可以让Nb能够避免出现因不同过敏原存在相似表位而引发的交叉反应问题,另一方面,Nb与传统抗体的表位识别模式具有互补性[36],该特性为开发高特异性、高灵敏度的双抗体夹心检测策略提供了理想条件。
1.3 稳定性强,免疫原性低
Nb在极端条件下能保持结构与功能稳定性。研究表明,Nb在宽温度范围(如-80、-20、4、60~80及37 ℃长期储存),宽pH值范围(3.0~9.0),高压条件(500~750 MPa)以及化学变性剂(2~3 mol/L氯化胍、6~8 mol/L尿素)处理后仍能保持抗原结合活性[37-38],这为其在各类食品检测环境中的应用提供了保障。此外,Nb对有机溶剂(如正己烷)的耐受性较强,可有效避免食品前处理中有机试剂残留对过敏原检测的干扰[39]。脂肪族指数是预测Nb热稳定性的正向指标,其值越高,热稳定性越强[40]。其次,Nb稳定性也依赖连接FR1和FR3的保守二硫键,该键埋藏于疏水核内,连接β折叠,使其结构更紧密[41]。除保守二硫键外,部分Nb还具有稳定可变区的额外二硫键,分别是连接CDR3与CDR1或CDR2/FR2边界的环间二硫键以及CDR3的环内二硫键[42]。研究表明,含双二硫键的Nb比仅含保守二硫键的Nb具有更高的热稳定性和构象稳定性[43]。Zhang等[44]比较Nb与mAb的热稳定性发现,mAb在80 ℃加热10 min后完全丧失抗原结合能力,而Nb在80 ℃处理60 min仍保留30%活性,且在90 ℃下仍能有效结合抗体,表明Nb的热稳定性显著优于mAb,该特性使Nb能适用于高温加工食品中过敏原检测。基因组比较显示,驼科动物VHH基因与人类VH基因同源性超80%,使Nb在体内免疫原性较低[25]。为提升生物相容性,体内融合表达、体外修饰等人源化策略已被开发[45]。Vincke等[46]构建了一种通用人源化Nb支架h-NbBcII10FGLA,显著降低免疫反应风险,为Nb应用于体内诊断或治疗奠定基础。
1.4 易于表达,制备成本低
Nb其分子结构简单、不易形成聚集体,且易进行基因工程改造,有利于规模化制备。可通过多种表达系统进行高效生产,包括原核(如大肠杆菌)、真核(酵母)、哺乳动物细胞以及多种植物表达系统(如大豆、烟草、水稻等)[47]。这种多元化的表达体系使Nb具有生产成本低、可规模化制备且批次间稳定性好等显著优势,为食品过敏原检测提供了稳定可靠的抗体来源[48]。He等[49]利用大肠杆菌系统表达抗黄曲霉毒素B1的Nb,产量达4.2 mg/L;Frenken等[50]利用毕赤酵母系统表达出2种抗黏蛋白1(mucin 1,MUC1)的Nb,经条件优化后产量提升至10~15 mg/L。Agrawal等[51]使用CHO细胞表达Nb,摇瓶产量高达100 mg/L。相比之下,传统抗体多用哺乳动物细胞表达系统,存在生产周期长(通常需要数周)、成本高昂(培养基和纯化费用高)且批次间差异明显等问题[52]。Nb的低成本、高产出以及优异的批次一致性,为食品安全监测领域的大规模应用提供了重要的优势。
2 抗过敏原Nb的制备
Nb在食源性过敏原检测中所展现的优异性能,得益于其成熟的制备流程与高效的筛选策略。目前,针对特定过敏原的Nb制备主要包括4个关键环节:动物免疫、免疫文库构建、噬菌体展示淘选与筛选以及表达与纯化。以花生过敏原Ara h 1特异性Nb的制备为例(图3)[28],首先,以Ara h 1蛋白作为免疫原对羊驼进行免疫,诱导其产生富含VHH片段的免疫应答;随后,从免疫羊驼的外周血淋巴细胞中提取总RNA并逆转录为cDNA,利用特异性引物扩增VHH基因片段,构建噬菌体展示文库;接着,采用固相化Ara h 1对文库进行多轮“吸附-洗脱-扩增”式生物淘选,以富集特异性结合Ara h 1的阳性克隆;最后,将筛选获得的阳性VHH基因在大肠杆菌WK6系统中进行重组表达,通过固定金属亲和层析和分子排阻色谱两步纯化获得Nb,并借助SDS-PAGE与Western blot验证其纯度,进一步对其亲和力、特异性等关键性能指标进行系统鉴定。
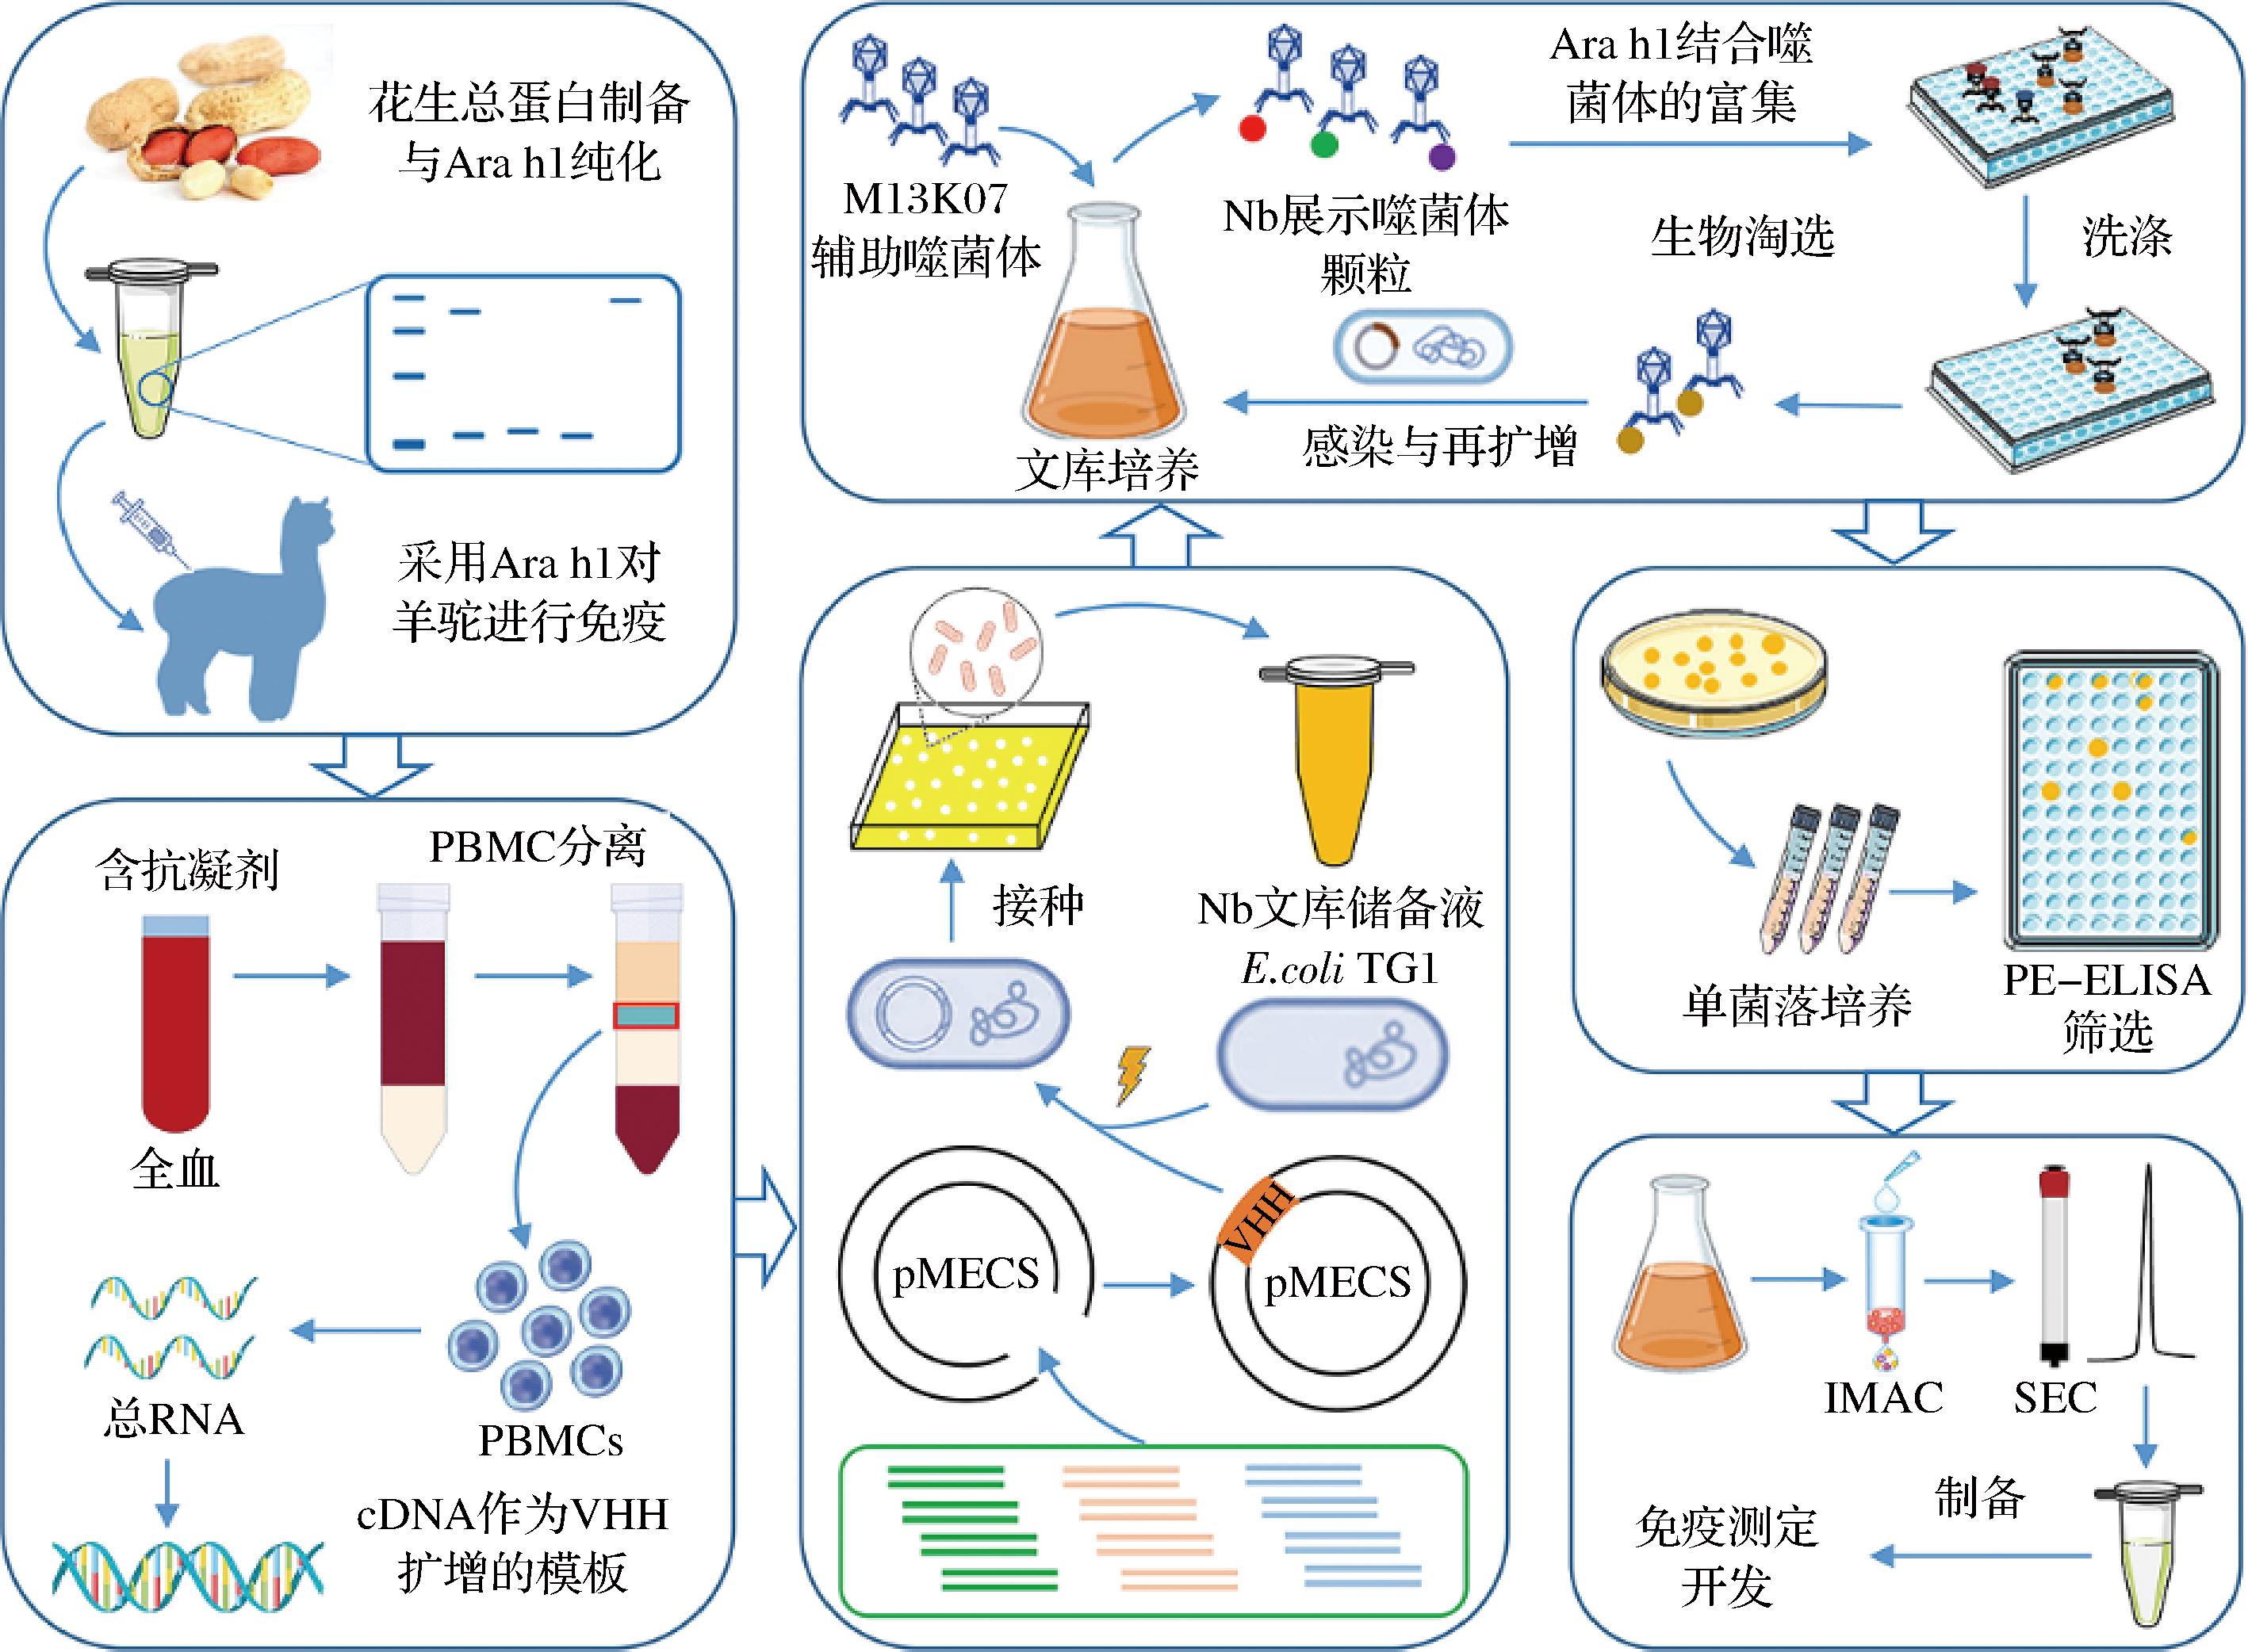
图3 花生过敏原Ara h 1的特异性Nbs的制备图[28]
Fig.3 Schematic diagram of the preparation of specific nanobodies against peanut allergen Ara h 1[28]
除花生过敏原外,牛乳过敏原β-LG的Nbs制备也遵循了类似策略。Hu等[53]以纯化的β-LG为抗原免疫羊驼,经噬菌体展示技术筛选获得高亲和力纳米抗体Nb82,将其作为免疫传感器的捕获或检测元件,应用于过敏原检测中,提升其检测性能。García-García等[54]则以商业麸质中提取的醇溶蛋白免疫羊驼,构建库容超108的免疫噬菌体展示文库,经多轮淘选获得可特异性识别小麦、大麦及黑麦麸质蛋白的纳米抗体dAb8E,并在毕赤酵母系统中表达,为后续建立高灵敏度ELISA检测方法奠定基础。综上,免疫与噬菌体展示技术是制备高性能抗过敏原Nb的主流成熟策略。随着合成生物学与人工智能辅助设计的发展,未来可能出现不依赖动物免疫的全合成Nb库,或通过理性设计对抗原表位进行精准靶向的Nb,进而推动食源性过敏原检测技术的革新。
3 Nb在食源性过敏原免疫分析检测中的应用
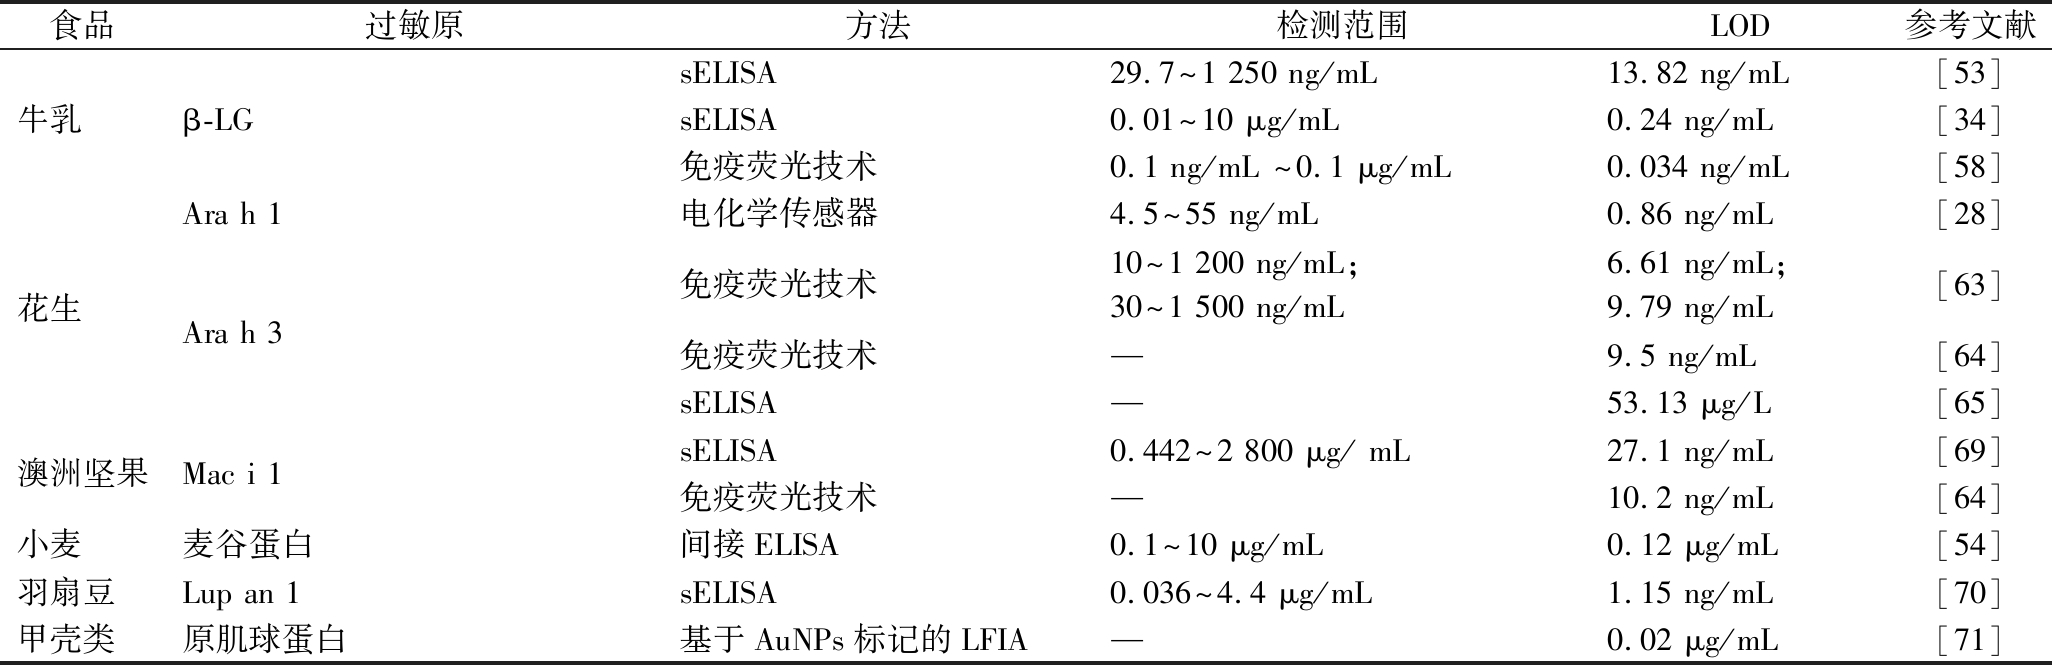
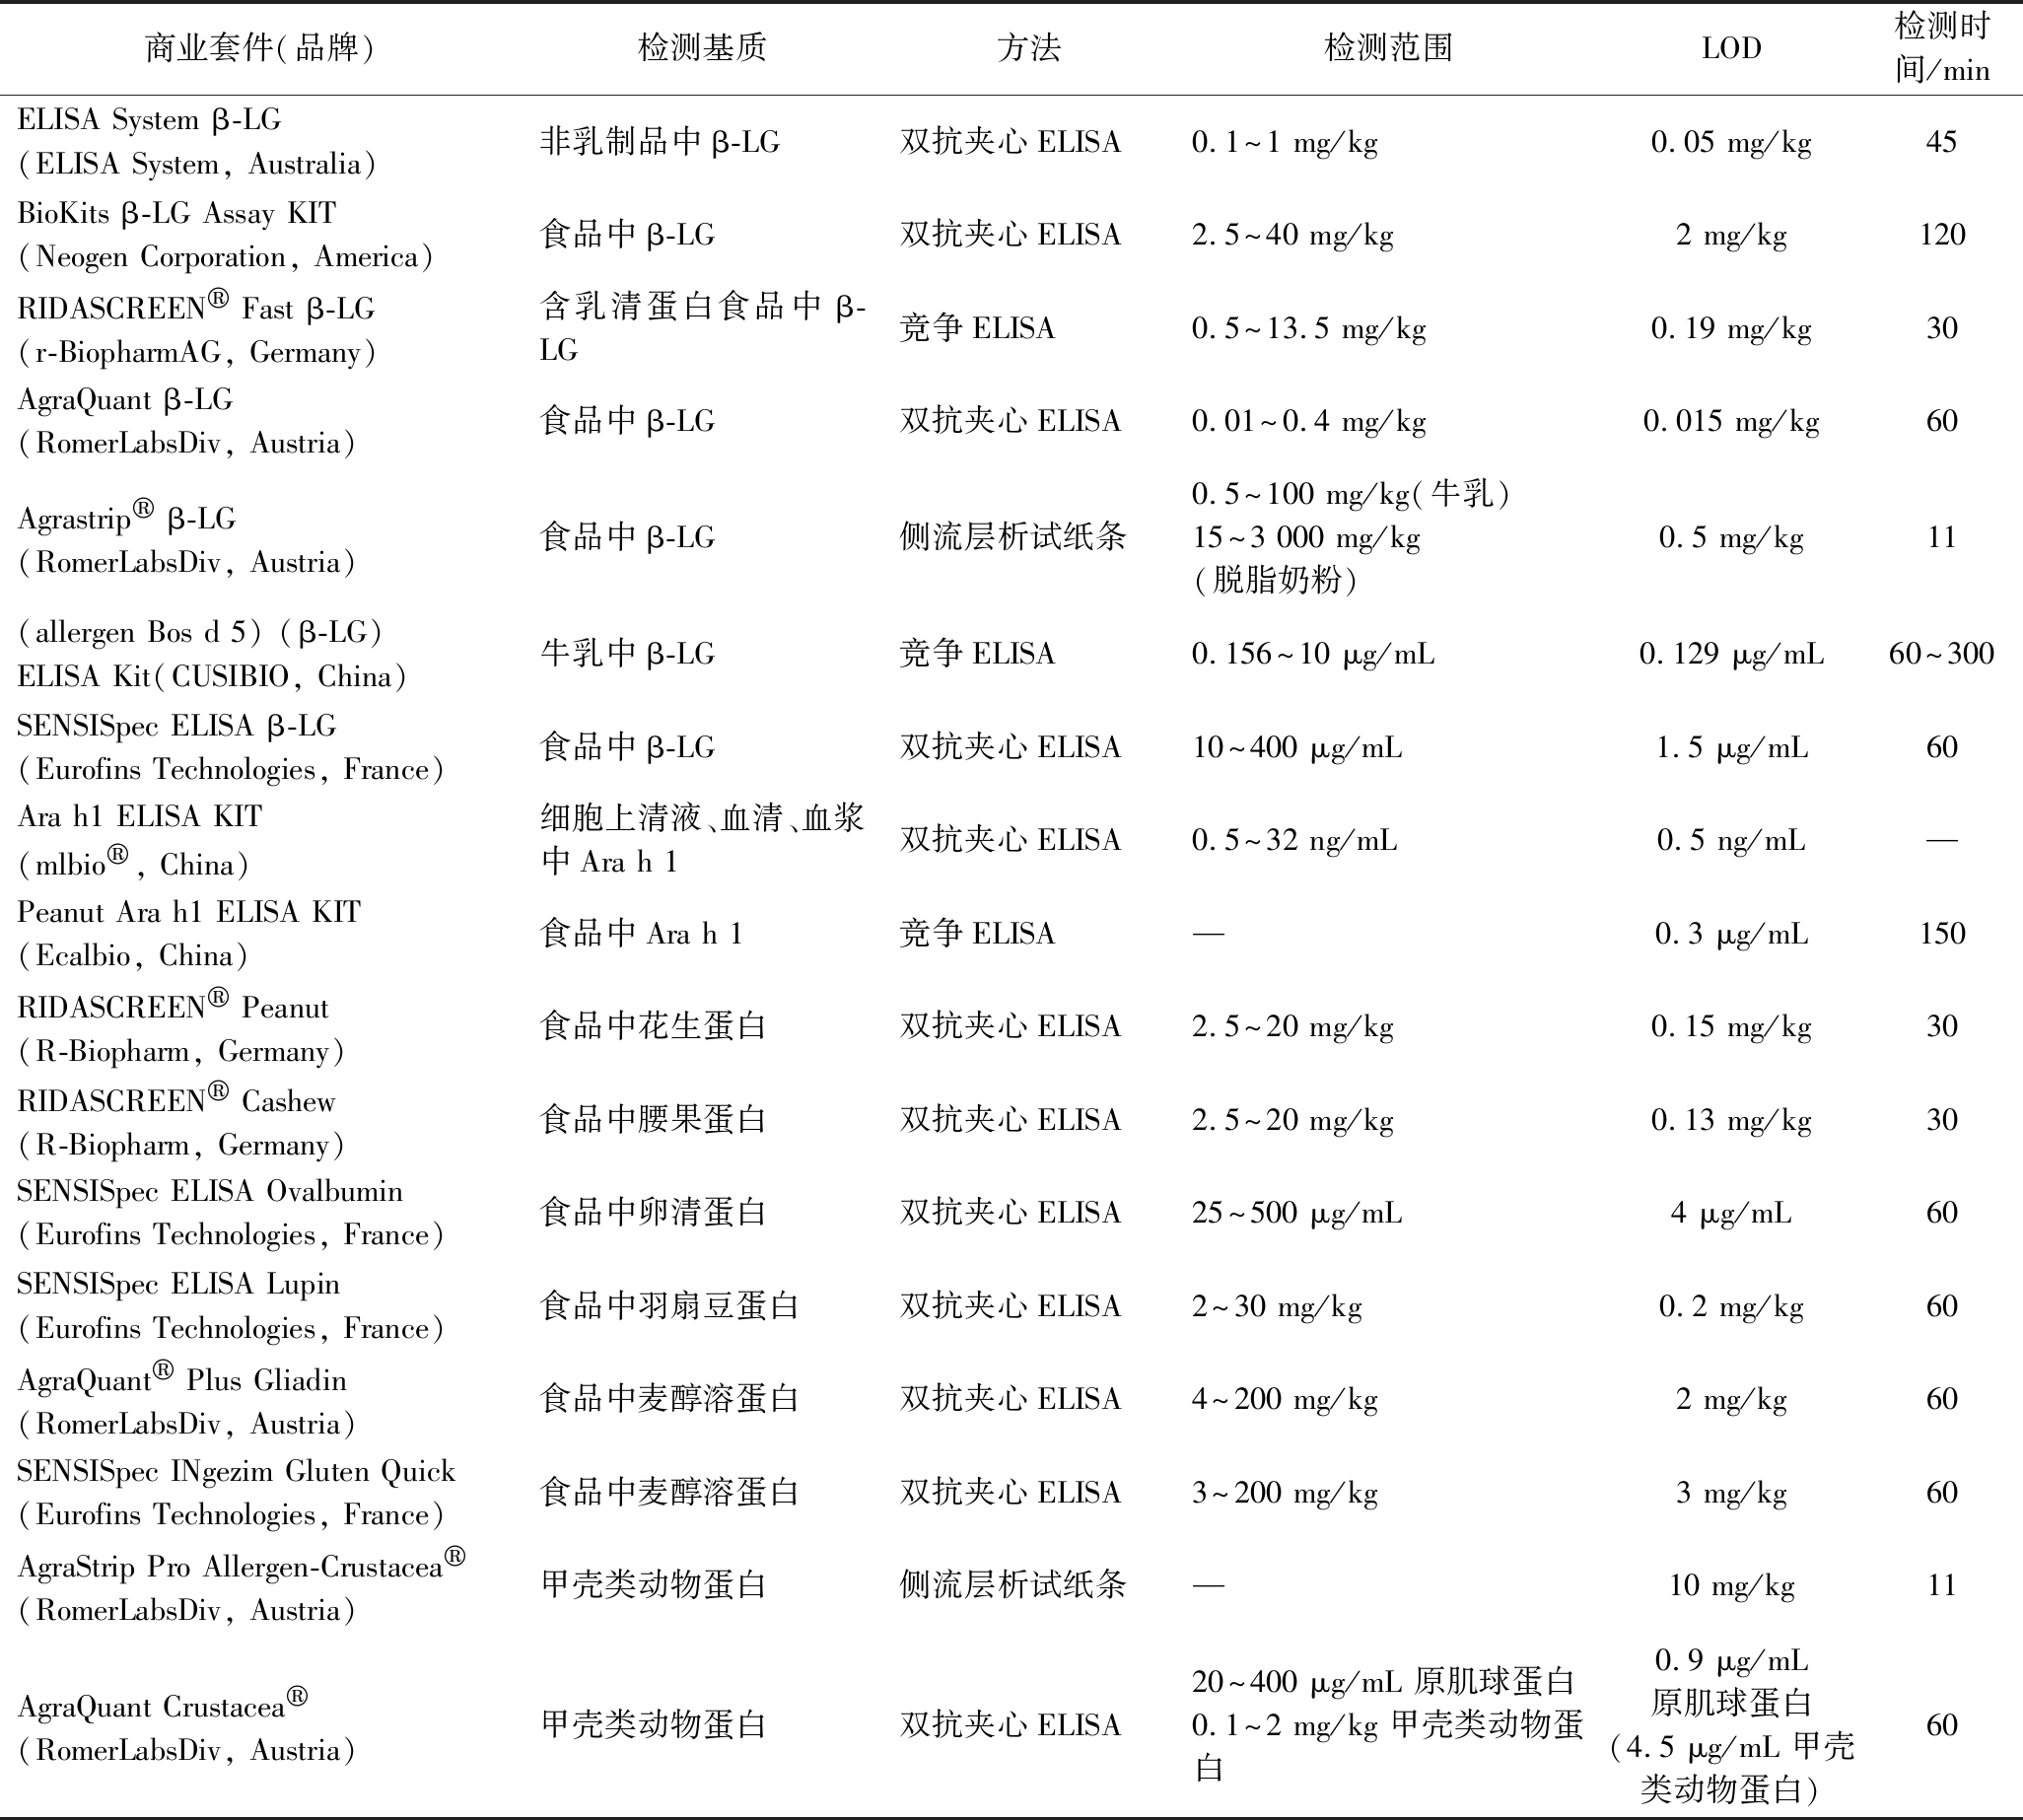
目前,ELISA被广泛用于食源性过敏原的检测中,基于常规抗体的检测对不同食物过敏原蛋白的存在交叉反应、有较高成本以及生产中的有批次差异等不足,基于Nb的免疫分析方法已被提出用于检测食源性过敏原,Nb凭借其独特优势,有利于检测方法的构建,展现了其在提升检测精度与效率方面的巨大潜力。表1概述了Nb在食源性过敏原检测中的应用,表2则汇总了目前市场上可用于不同食源性过敏原检测的商业试剂盒产品,从而有助于了解国内外过敏原检测的现状。
表1 Nbs在食源性过敏原检测中的应用
Table 1 Application of Nbs in the detection of foodborne allergens
注:“—”代表未标明(下同)。
食品过敏原方法检测范围LOD参考文献牛乳β-LGsELISA29.7~1 250 ng/mL13.82 ng/mL[53]sELISA0.01~10 μg/mL0.24 ng/mL[34]免疫荧光技术0.1 ng/mL ~0.1 μg/mL0.034 ng/mL[58]花生Ara h 1Ara h 3电化学传感器4.5~55 ng/mL0.86 ng/mL[28]免疫荧光技术10~1 200 ng/mL;30~1 500 ng/mL6.61 ng/mL;9.79 ng/mL[63]免疫荧光技术—9.5 ng/mL[64]sELISA—53.13 μg/L[65]澳洲坚果Mac i 1sELISA0.442~2 800 μg/ mL27.1 ng/mL[69]免疫荧光技术—10.2 ng/mL[64]小麦麦谷蛋白间接ELISA0.1~10 μg/mL0.12 μg/mL[54]羽扇豆Lup an 1sELISA0.036~4.4 μg/mL1.15 ng/mL[70]甲壳类原肌球蛋白基于AuNPs标记的LFIA—0.02 μg/mL[71]
表2 检测食源性过敏原的商业化试剂盒
Table 2 Commercialization test kits for detecting food allergens
注:“—”代表未标明。
商业套件(品牌)检测基质方法检测范围LOD检测时间/minELISA System β-LG(ELISA System, Australia)非乳制品中β-LG双抗夹心ELISA0.1~1 mg/kg0.05 mg/kg45 BioKits β-LG Assay KIT(Neogen Corporation, America)食品中β-LG双抗夹心ELISA2.5~40 mg/kg2 mg/kg120 RIDASCREEN®Fast β-LG(r-BiopharmAG, Germany)含乳清蛋白食品中β-LG竞争ELISA0.5~13.5 mg/kg0.19 mg/kg30AgraQuant β-LG(RomerLabsDiv, Austria)食品中β-LG双抗夹心ELISA0.01~0.4 mg/kg0.015 mg/kg60Agrastrip® β-LG(RomerLabsDiv, Austria)食品中β-LG侧流层析试纸条0.5~100 mg/kg(牛乳)15~3 000 mg/kg(脱脂奶粉)0.5 mg/kg11(allergen Bos d 5) (β-LG)ELISA Kit(CUSIBIO, China) 牛乳中β-LG竞争ELISA0.156~10 μg/mL0.129 μg/mL60~300 SENSISpec ELISA β-LG (Eurofins Technologies, France)食品中β-LG双抗夹心ELISA10~400 μg/mL1.5 μg/mL60Ara h1 ELISA KIT(mlbio®, China)细胞上清液、血清、血浆中Ara h 1双抗夹心ELISA0.5~32 ng/mL0.5 ng/mL—Peanut Ara h1 ELISA KIT(Ecalbio, China)食品中Ara h 1竞争ELISA—0.3 μg/mL150RIDASCREEN® Peanut(R-Biopharm, Germany)食品中花生蛋白双抗夹心ELISA2.5~20 mg/kg0.15 mg/kg30RIDASCREEN® Cashew(R-Biopharm, Germany)食品中腰果蛋白双抗夹心ELISA2.5~20 mg/kg0.13 mg/kg30SENSISpec ELISA Ovalbumin (Eurofins Technologies, France) 食品中卵清蛋白双抗夹心ELISA25~500 μg/mL4 μg/mL60 SENSISpec ELISA Lupin (Eurofins Technologies, France)食品中羽扇豆蛋白双抗夹心ELISA2~30 mg/kg0.2 mg/kg60 AgraQuant® Plus Gliadin(RomerLabsDiv, Austria)食品中麦醇溶蛋白双抗夹心ELISA4~200 mg/kg2 mg/kg60SENSISpec INgezim Gluten Quick(Eurofins Technologies, France) 食品中麦醇溶蛋白双抗夹心ELISA3~200 mg/kg3 mg/kg60AgraStrip Pro Allergen-Crustacea®(RomerLabsDiv, Austria)甲壳类动物蛋白侧流层析试纸条—10 mg/kg11AgraQuant Crustacea®(RomerLabsDiv, Austria)甲壳类动物蛋白双抗夹心ELISA20~400 μg/mL 原肌球蛋白0.1~2 mg/kg 甲壳类动物蛋白0.9 μg/mL 原肌球蛋白(4.5 μg/mL 甲壳类动物蛋白)60
3.1 牛乳过敏原
牛乳是世界卫生组织/联合国粮农组织认定的八大过敏原之一。牛乳过敏在婴幼儿和儿童发病率高[55],约0.6%~2.5%的学龄前儿童、0.3%的青少年和不到0.5%的成年人受到影响[56]。牛乳中包含11种过敏原,其主要过敏原为酪蛋白(CN, Bos d8)和β-乳球蛋白(β-LG, Bos d5)[57]。
Hu等[53]利用特异性纳米抗体Nb82与β-LG多克隆抗体(pAb-β-LG)建立 sELISA方法,实现了牛乳中β-LG的检测,其线性范围为29.7~1 250 ng/mL,LOD值为13.82 ng/mL,加标回收率范围为87.82%~103.97%,显示出良好的准确性与实用性。在另一研究中,Li等[34]将抗β-LG mAb与Nb联用,建立了超灵敏的sELISA方法,LOD值降低至0.24 ng/mL,检测范围0.01~10 μg/mL,并系统评价了Nb在识别天然与热处理β-LG方面的优势,发现Nb作为捕获抗体能够有效识别变性后暴露的隐藏表位。同时发现,β-LG自身热变性并不影响其检测灵敏度,但高温会导致β-LG与乳糖或κ-酪蛋白之间相互作用遮蔽其部分表位,从而显著干扰Nb82对β-LG的特异性识别,影响检测结果。表2中商业ELISA试剂盒检测β-LG的LOD多处于mg/kg级别,易受到抗体亲和力与反应效率限制,难以实现微量过敏原检测。相比之下,Nb介导的sELISA方法较传统ELISA灵敏度提升了60~100倍,显著提升其检测能力;在复杂食品基质中商业试剂盒易因非特异性结合而产生偏差,而Nb抗干扰能力较强,检测准确性优于商业试剂盒。此外,商业试剂盒采用的传统抗体对温度、pH及溶剂等条件敏感,易受影响;Nb则表现出优异的稳定性,耐温、耐酸碱及有机溶剂,进一步保证了结果的可靠性。Li等[58]开发了一种Nb的双模式(荧光-光热)免疫传感器,采用红色碳点和氧化3,3′,5,5′- 四甲基联苯胺(3,3′,5,5′-tetramethylbenzidine, TMB)作为信号探针,实现对β-LG的高灵敏度检测,荧光与光热模式的检测范围均为0.1 ng/mL~0.1 μg/mL,LOD值分别为0.034、0.075 ng/mL。与表2中商业试剂盒相比,基于Nb的免疫传感器具有更高灵敏度,但还需激光器、红外热成像仪等仪器进行检测,检测较为受限。此外,该方法也可用于牛乳质量评估、巴氏乳和超高温瞬时杀菌乳的鉴定、乳饮料中牛乳含量监测,以及无乳饮料中过敏原检测。在该免疫传感器中,Nb作为识别元件具有多重优势:首先,其缺乏传统抗体中的可结晶片段(fragment crystallizable,Fc),有效避免非特异性结合,显著降低背景干扰,从而提升了检测的信噪比与灵敏度;其次,Nb具有高特异性,确保荧光与光热信号完全来源于目标分子β-LG,保障结果的准确性;此外,Nb与酶标记物辣根过氧化物酶(horseradish peroxidase, HRP)协同作用,可高效催化底物反应,增强信号输出强度,进一步提高了检测的可靠性与实用性。尽管,Nb在牛乳过敏原检测中表现出优越性能,但其在实际复杂的食品基质中的应用仍可能受到蛋白变性和其他成分干扰的影响,需要进一步优化抗体与样品前处理策略。
3.2 花生过敏原
花生过敏原在西方国家较为常见,危害严重,极少剂量(1.5 mg)即可诱发约5%过敏人群出现反应,且多为终身性,极少数人成年后能够脱敏[59]。花生中鉴定出17种过敏原(Ara h 1~Ara h 18)[60],其中,Ara h 1和Ara h 3是主要过敏蛋白。Ara h 1是一种7S拟青霉素样糖蛋白(63.5 kDa),能够影响35%~95%的花生过敏患者[61],Ara h 3是一种具有多种异构体的11S蛋白,影响大约50%的花生过敏患者,被认定为主要花生过敏原之一[62]。
Freitas等[27]开发基于mAb的电化学免疫传感器检测Ara h 1,其LOD值为5.2 ng/mL,线性范围为25~1 000 ng/mL。相比之下,Hu等[28]开发了基于Nb的微量全电化学免疫测定法(Nb-μTEI),用于检测Ara h 1,线性范围为4.5~55 ng/mL,LOD值和定量限(limit of quantification, LOQ)分别为0.86、2.10 ng/mL,灵敏度较传统sELISA(采用自配对Nb)提高了11倍。Nb-μTEI充分利用Nb易于基因工程改造的特性,结合碱性磷酸酶催化信号放大特点,显著提高Ara h 1的检测灵敏度,并且基于Nb的方法灵敏度优于mAb;但其检测范围相对较窄,仍有待进一步优化。Yao等[63]建立了双模式免疫分析策略,结合比色法与比率荧光技术,通过HRP催化邻苯二胺氧化生成黄色产物2,3-二氨基吩嗪(2,3-diaminophenazine, DAP),利用DAP的内滤光效应猝灭硼氮共掺杂碳点(boron and nitrogen co-doped carbon dots, B/N-CDs)荧光并产生新发射峰,实现对花生过敏原Ara h 3的精确测定。其荧光与比色模式的检测范围分别为10~1 200、30~1 500 ng/mL,LOD值分别为6.61、9.79 ng/mL。该方法中比色法与比率荧光法源于同一化学反应,2种模式同步输出检测结果并实现相互验证,从而有效降低单一检测的风险;Nb的引入进一步提升了方法性能,其对目标花生过敏原Ara h 3表现出高亲和力,可实现痕量目标的精准捕获,同时与大豆、腰果等过敏原无交叉反应,显著增强其特异性。该方法兼具双模式自验证能力与高特异性,适用于食品中痕量花生过敏原的高灵敏检测,尤其适合于对结果准确性要求严格的应用场景,如食品过敏原标识合规性验证等。Wang等[64]利用CDs@SiO2与噬菌体展示Nb构建免疫荧光探针,结合磁珠分离技术检测花生过敏原Ara h 3,其LOD值为9.5 ng/mL,灵敏度为传统方法的2~5倍。该法中利用Nb表面氨基酸位点易修饰特性,将其与M13噬菌体蛋白、磁珠等载体高效偶联,从而快速富集过敏原,减少样品基质干扰,增强检测灵敏度。张川[65]成功筛选出可自配对的抗Ara h 3纳米抗体P43,建立sELISA检测方法,LOD值和LOQ值分别为53.13、189.11 μg/L,加标回收率为93.8%~114.7%,变异系数(coefficient of variation, CV)<5.0%,显示出良好的重复性与可靠性。Lin等[66]建立了基于pAb的sELISA方法用于花生过敏原Ara h 3的检测,其LOD值为0.023 μg/mL,线性范围为0.024~25 μg/mL。与基于Nb的双模式免疫分析及荧光免疫方法相比,该方法的灵敏度较低;而Nb因其结构特性具备多模式检测兼容性,可灵活适配比色、荧光等多种检测技术,从而实现更快速、更灵敏的检测。而现有研究中基于Nb的sELISA灵敏度较低,推测可能是由于方法开发时仅针对抗体浓度进行优化,尚未充分发挥Nb的优势,导致其灵敏度低于基于pAb的sELISA方法。目前针对花生过敏原的Nb研究多集中于Ara h 1和Ara h 3,对于其他过敏原的检测仍显不足,且现有技术多处于实验室阶段,应继续推动向实用化与标准化发展。
3.3 澳洲坚果过敏原
澳洲坚果,又称夏威夷果,因口感好且富含脂肪、蛋白质和矿物质等营养物质而深受大众喜爱[67],但同时也会引起过敏反应的发生。临床显示,天然和经烘烤处理的澳洲坚果都会使过敏人群出现周身发痒、浮肿、呼吸受阻乃至昏厥等症状[68]。Hu等[69]通过筛选获得特异性识别澳洲坚果过敏原Mac i 1的Nb,建立异源sELISA方法,线性范围为0.442~2 800 μg/mL,LOD值为27.1 ng/mL。Wang等[64]为实现信号放大与增强方法稳定性,利用多色荧光标记技术,实现了花生过敏蛋白Ara h 3和澳洲坚果蛋白Mac i 1的同时检测,LOD值分别为9.5、10.2 ng/mL,相比于表2中商业ELISA试剂盒检测坚果蛋白,该方法LOD更低且检测范围较宽,Ara h 3和Mac i 1的线性范围分别为22.1~2 000、23.1~2 000 ng/mL,其加标回收率分别在86.30%~104.36%、86.75%~104.92%,实际样品检测性能更优,相对标准偏差均低于10%,证明该实验重复性较好;该方法结合Nb实现多靶标检测,提升检测效率;检测过程无需传统ELISA的洗板步骤,检测时间从传统ELISA的2~3 h缩短至1 h,操作更简便。基于Nb的免疫分析方法在过敏原检测中表现出高灵敏度和良好重复性,为检测过敏原提供有效技术手段。
3.4 其他过敏原
除上述过敏原外,Nb在检测小麦麸质、羽扇豆及甲壳类原肌球蛋白等方面也显示出潜力。García-García等[54]利用毕赤酵母表达抗麸质纳米抗体dAb8E,建立间接ELISA方法用于分析食品中麸质谷物(小麦、大麦和黑麦),其检测范围为0.1~10 μg/mL,LOD值为0.12 μg/mL。其灵敏度优于表2中商品化试剂盒,为无麸质食品检测提供了新工具。Hu等[70]利用特异性Nb开发了针对羽扇豆过敏原Lup an 1的sELISA方法,线性范围为0.036~4.4 μg/mL,LOD值为1.15 ng/mL,加标回收率为86.25%~108.45%,CV<4.0%,该方法能有效监测食品中的羽扇豆过敏原。Jiao等[71]分离出可变新抗原受体(variable new antigen receptor, VNAR)纳米抗体,基于鲨鱼VNAR和金纳米粒子(gold nanoparticles,AuNPs)标记探针,建立竞争型LFIA法,以实现甲壳类水产品中的原肌球蛋白的检测。该方法测试仅需要15 min,视觉检测限为0.1 μg/mL,仪器LOD值为0.02 μg/mL,适用于现场快速筛查。由于VNAR稳定性高,在高温、酸碱变化等条件下仍能保持活性,使得所制备的试纸条稳定性强,室温长期储存(2个月)后仍保持稳定。此外,VNAR结构简单,缺乏Fc片段,能够避免非特异性结合,并易于进行工程化改造,有利于LFIA方法的开发。针对其他过敏原的检测,目前国内外的商业试剂盒多采用mAb或pAb等传统抗体进行检测,相比之下,尽管Nb介导的检测方法在检测范围上较传统方法略窄,但其在检测灵敏度方面表现出显著优势,为食品安全和过敏原防控提供的技术支持和策略选择。
4 结论与展望
随着全球过敏人群的持续增长,食源性过敏原的快速、精准检测已成为食品安全监管领域的核心议题。在此背景下,Nb凭借其分子质量小、亲和力高、稳定性强以及易于表达和生产等优势,在突破传统抗体检测方法灵敏度有限、抗干扰能力弱等瓶颈方面展现出显著潜力,为食源性过敏原检测提供了新一代技术路径。
然而,当前Nb在实际检测应用中仍面临多方挑战。在技术层面:1)多数检测策略仍依赖传统抗体,尤其在sELISA中需要与mAb/pAb联用,极少能脱离传统抗体检测,需进一步研发脱离传统抗体即可检测过敏原的方法;2)检测方法多样性不足,尽管已有研究尝试将Nb与免疫传感器、荧光标记等技术结合,但主流平台仍以sELISA为主,亟需发展与微流控技术、生物传感、人工智能等新兴技术融合的高通量、实时化方法;3)检测过敏原单一,食品含多种过敏原,现有体系大多针对单一过敏原,难以应对食品中多种过敏原共存的复杂场景,开发高效、低成本的多重同步检测技术是未来的重要方向。此外,Nb针对某些重要过敏原(如鸡蛋、鱼类、豆类蛋白)的识别原件仍较为缺乏,抗体库覆盖范围有待扩充。此外,Nb自身的开发与制备也存在局限性:1)常规噬菌体展示技术筛选繁琐,周期较长[72];2)原核表达系统易形成无活性的包涵体,需要进行复性工艺,真核表达系统则存在表达量低的问题[73];3)免疫制备过程也存在固有局限,依赖动物免疫,对弱免疫原性靶标抗体开发效率低[74]。这些因素均制约了Nb的标准化生产和广泛应用。
目前,Nb在过敏原识别机制方面的研究仍处于探索阶段,现有研究多聚焦于检测方法的开发,包括免疫学方法(ELISA等)、生物传感器及质谱技术等。未来可凭借Nb的独特优势,结合高通量测序、微流控等新兴技术手段进一步开发灵敏、快速的过敏原检测技术,以满足复杂检测场景需求。目前已有研究利用Nb构建微流控平台,实现快速、自动化的蛋白纯化[75];将荧光检测系统与微流控技术结合同时检测2种农药[76],但Nb与微流控技术相结合检测过敏原未见报道。因此,将Nb与微流控技术等技术相结合,可为今后开发新一代食物过敏原的精准检测提供参考。
[1] 佟鑫, 张俊晶. 食物过敏的免疫致敏机制及免疫脱敏治疗[J]. 中华临床免疫和变态反应杂志, 2022, 16(6):636-641.Tong X, Zhang J J. Mechanism of immune sensitization and immunotherapy of food allergy[J]. Chinese Journal of Allergy &Clinical Immunology, 2022, 16(6):636-641.
[2] Anvari S, Miller J, Yeh C Y, et al. IgE-mediated food allergy[J]. Clinical Reviews in Allergy &Immunology, 2019, 57(2):244-260.
[3] Cianferoni A. Non-IgE-mediated anaphylaxis[J]. The Journal of Allergy and Clinical Immunology, 2021, 147(4):1123-1131.
[4] Sicherer S H, Sampson H A. Food allergy: Epidemiology, pathogenesis, diagnosis, and treatment[J]. Journal of Allergy and Clinical Immunology, 2014, 133(2):291-307.e5.
[5] Messina M, Venter C. Recent surveys on food allergy prevalence[J]. Nutrition Today, 2020, 55(1):22-29.
[6] Weiss S, Smith D. Open sesame: Shedding light on an emerging global allergen[J]. Annals of Allergy, Asthma &Immunology, 2023, 130(1):40-45.
[7] 美国食品药品监督管理局(FDA). 食品过敏原标识与消费者保护法(FALCPA).[DB/OL]. (2004-08-02) .https://www.fda.gov/food/food-allergens-gluten-free-guidance-documents-regulatory-information/food-allergen-labeling-and-consumer-protection-act-2004-falcpa.
[8] 王梦娟, 李江华, 郭林宇, 等. 欧盟食品中过敏原标识的管理及对我国的启示[J]. 食品科学, 2014, 35(1):261-265.Wang M J, Li J H, Guo L Y, et al. Food allergen labeling management: A review of the European experience and its inspiration for China[J]. Food Science, 2014, 35(1):261-265.
[9] GB 7718—2011 食品安全国家标准 预包装食品标签通则[S]. GB 7718—2011 National food safety standard general rules for nutrition labeling of prepackaged foods [S].
[10] Campuzano S, Ruiz-Valdepe as Montiel V, Serafín V, et al. Cutting-edge advances in electrochemical affinity biosensing at different molecular level of emerging food allergens and adulterants[J]. Biosensors, 2020, 10(2):10.
[11] 殷冉, 陈君义, 王毅谦. 食品过敏原标签要求及生产过程控制初探[J]. 食品安全质量检测学报, 2017, 8(4):1127-1131.Yin R, Chen J Y, Wang Y Q. Preliminary study on food labeling requirements of allergens and their process control[J]. Journal of Food Safety &Quality, 2017, 8(4):1127-1131.
[12] 宁亚维, 杨正, 马梦戈, 等. 食品中常见过敏原及检测技术研究进展[J]. 食品科学, 2021, 42(15):319-328.Ning Y W, Yang Z, Ma M G, et al. Progress in common food allergens and technologies for their detection[J]. Food Science, 2021, 42(15):319-328.
[13] Gupta M K, Ghuge A, Parab M, et al. A comparative review on high-performance liquid chromatography (HPLC), ultra performance liquid chromatography (UPLC) &high-performance thin layer chromatography (HPTLC) with current updates[J]. Current Issues in Pharmacy and Medical Sciences, 2022, 35(4):224-228.
[14] García A, Madrid R, García T, et al. Detection of food allergens by taqman real-time PCR methodology[M]. Food Allergens: Methods and Protocols. New York, NY: Springer New York, 2017:95-108.
[15] Alves R C, Barroso M F, González-García M B, et al. New trends in food allergens detection: Toward biosensing strategies[J]. Critical Reviews in Food Science and Nutrition, 2016, 56(14):2304-2319.
[16] Liu C Q, Su M N, Champ V D, et al. Validation procedures for quantification of food allergens by enzyme-linked immunosorbent assay (ELISA)[M]. Food Allergens: Methods and Protocols. New York, NY: Springer US, 2024:285-304.
[17] 张爱琳. 一种食品过敏原快速检测试剂盒: CN202120642333.X[P]. 2021-11-12. Zhang A L. A rapid test kit for food allergens: CN202120642333.X[P]. 2021-11-12.
[18] Orcajo J, Lavilla M, Martínez-de-Maraón I. Specific and sensitive ELISA for measurement of IgE-binding variations of milk allergen β-lactoglobulin in processed foods[J]. Analytica Chimica Acta, 2019, 1052:163-169.
[19] Gomaa A, Boye J. Simultaneous detection of multi-allergens in an incurred food matrix using ELISA, multiplex flow cytometry and liquid chromatography mass spectrometry (LC-MS)[J]. Food Chemistry, 2015, 175:585-592.
[20] Hu Y Z, Wang Y, Lin J, et al. Versatile application of nanobodies for food allergen detection and allergy immunotherapy[J]. Journal of Agricultural and Food Chemistry, 2022, 70(29):8901-8912.
[21] Hamers-Casterman C, Atarhouch T, Muyldermans S, et al. Naturally occurring antibodies devoid of light chains[J]. Nature, 1993, 363(6428):446-448.
[22] Hassanzadeh-Ghassabeh G, Devoogdt N, De Pauw P, et al. Nanobodies and their potential applications[J]. Nanomedicine, 2013, 8(6):1013-1026.
[23] Li M, Fan X D, Liu J, et al. Selection by phage display of nanobodies directed against hypoxia inducible factor-1α (HIF-1α)[J]. Biotechnology and Applied Biochemistry, 2015, 62(6):738-745.
[24] Sun S Y, Ding Z Q, Yang X M, et al. Nanobody: A small antibody with big implications for tumor therapeutic strategy[J]. International Journal of Nanomedicine, 2021, 16.: 2337-2356.
[25] Kumar H, Finer-Moore J S, Jiang X X, et al. Crystal structure of a ligand-bound LacY-nanobody complex[J]. Proceedings of the National Academy of Sciences of the United States of America, 2018, 115(35):8769-8774.
[26] Muyldermans S. Applications of nanobodies[J]. Annual Review of Animal Biosciences, 2021, 9:401-421.
[27] Freitas M, Neves M M P S, Nouws H P A, et al. Electrochemical immunosensor for the simultaneous determination of two main peanut allergenic proteins (Ara h 1 and Ara h 6) in food matrices[J]. Foods, 2021, 10(8):1718.
[28] Hu Y Z, Lin J, Peng L J, et al. Nanobody-based electrochemical immunoassay for sensitive detection of peanut allergen Ara h 1[J]. Journal of Agricultural and Food Chemistry, 2023, 71(19):7535-7545.
[29] Li C, Tang Z R, Hu Z X, et al. Natural single-domain antibody-nanobody: A novel concept in the antibody field[J]. Journal of Biomedical Nanotechnology, 2018, 14(1):1-19.
[30] Muyldermans S. Nanobodies: Natural single-domain antibodies[J]. Annual Review of Biochemistry, 2013, 82:775-797.
[31] 薛琪. 纳米抗体及其应用研究概述[J]. 生物学教学, 2024, 49(8):5-9.Xue Q. Overview of research on nanobodies and its applications[J]. Biology Teaching, 2024, 49(8):5-9.
[32] Arbabi-Ghahroudi M. Camelid single-domain antibodies: Promises and challenges as lifesaving treatments[J]. International Journal of Molecular Sciences, 2022, 23(9):5009.
[33] Muyldermans S, Baral T N, Retamozzo V C, et al. Camelid immunoglobulins and nanobody technology[J]. Veterinary Immunology and Immunopathology, 2009, 128(1-3):178-183.
[34] Li S J, Nie L Q, Wang Y, et al. Detection of β-lactoglobulin under different thermal-processing conditions by immunoassay based on nanobody and monoclonal antibody[J]. Food Chemistry, 2023, 424:136337.
[35] Bu G H, Luo Y K, Zheng Z, et al. Effect of heat treatment on the antigenicity of bovine α-lactalbumin and β-lactoglobulin in whey protein isolate[J]. Food and Agricultural Immunology, 2009, 20(3):195-206.
[36] Uchański T, Pardon E, Steyaert J. Nanobodies to study protein conformational states[J]. Current Opinion in Structural Biology, 2020, 60:117-123.
[37] Dumoulin M, Conrath K, Van Meirhaeghe A, et al. Single-domain antibody fragments with high conformational stability[J]. Protein Science, 2002, 11(3):500-515.
[38] Jov evska I, Muyldermans S. The therapeutic potential of nanobodies[J]. BioDrugs, 2020, 34(1):11-26.
[39] Wu J, Liu Y, Peng L J, et al. A plasmonic fluor-lightened microneedle array enables ultrasensitive multitarget whole blood diagnosis of anemia in a paper origami-based device[J]. Small, 2023, 19(26): e2300464.
[40] Kunz P, Flock T, Soler N, et al. Exploiting sequence and stability information for directing nanobody stability engineering[J]. Biochimica et Biophysica Acta (BBA) - General Subjects, 2017, 1861(9):2196-2205.
[41] 何晓婷, 董洁娴, 沈兴, 等. 纳米抗体的稳定性及其结构基础研究进展[J]. 生物化学与生物物理进展, 2022, 49(6):1004-1017.He X T, Dong J X, Shen X, et al. Advances on the relationship between stability and structure of nanobody[J]. Progress in Biochemistry and Biophysics, 2022, 49(6):1004-1017.
[42] Melarkode Vattekatte A, Shinada N K, Narwani T J, et al. Discrete analysis of camelid variable domains: Sequences, structures, and in-silico structure prediction[J]. PeerJ, 2020, 8: e8408.
[43] Saerens D, Conrath K, Govaert J, et al. Disulfide bond introduction for general stabilization of immunoglobulin heavy-chain variable domains[J]. Journal of Molecular Biology, 2008, 377(2):478-488.
[44] Zhang C X, Zhang Q, Tang X Q, et al. Development of an anti-idiotypic VHH antibody and toxin-free enzyme immunoassay for ochratoxin a in cereals[J]. Toxins, 2019, 11(5):280.
[45] Behdani M, Zeinali S, Karimipour M, et al. Development of VEGFR2-specific Nanobody Pseudomonas exotoxin A conjugated to provide efficient inhibition of tumor cell growth[J]. New Biotechnology, 2013, 30(2):205-209.
[46] Vincke C, Loris R, Saerens D, et al. General strategy to humanize a camelid single-domain antibody and identification of a universal humanized nanobody scaffold[J]. Journal of Biological Chemistry, 2009, 284(5):3273-3284.
[47] Liu Y K, Huang H. Expression of single-domain antibody in different systems[J]. Applied Microbiology and Biotechnology, 2018, 102(2):539-551.
[48] 高家昊, 郦娟, 褚冲, 等. 纳米抗体在食源性微生物污染检测中的应用[J]. 食品安全质量检测学报, 2024, 15(9):11-18.Gao J H, Li J, Chu C, et al. Application of nanobodies in the detection of foodborne microbial contamination[J]. Journal of Food Safety &Quality, 2024, 15(9):11-18.
[49] He T, Wang Y R, Li P W, et al. Nanobody-based enzyme immunoassay for aflatoxin in agro-products with high tolerance to cosolvent methanol[J]. Analytical Chemistry, 2014, 86(17):8873-8880.
[50] Frenken L G J, van der Linden R H J, Hermans P W J J, et al. Isolation of antigen specific llama VHH antibody fragments and their high level secretion by Saccharomyces cerevisiae[J]. Journal of Biotechnology, 2000, 78(1):11-21.
[51] Agrawal V, Slivac I, Perret S, et al. Stable expression of chimeric heavy chain antibodies in CHO cells[M]. Single Domain Antibodies: Methods and Protocols. Totowa, NJ: Humana Press, 2012:287-303.
[52] Laustsen A H, Greiff V, Karatt-Vellatt A, et al. Animal immunization, in vitro display technologies, and machine learning for antibody discovery[J]. Trends in Biotechnology, 2021, 39(12):1263-1273.
[53] Hu Y Z, Wang Y, Nie L Q, et al. Exploration of specific nanobodies as immunological reagents to detect milk allergen of β-lactoglobulin without interference of hydrolytic peptides[J]. Journal of Agricultural and Food Chemistry, 2022, 70(48):15271-15282.
[54] García-García A, Madrid R, Garcia-Calvo E, et al. Production of a recombinant single-domain antibody for gluten detection in foods using the Pichia pastoris expression system[J]. Foods, 2020, 9(12):1838.
[55] 张秋会, 申家龙, 白玉斌, 等. 牛乳过敏及其降敏技术研究进展[J]. 食品科学, 2024, 45(18):315-325.Zhang Q H, Shen J L, Bai Y B, et al. Research progress on cow milk allergy and techniques for reducing its allergenicity[J]. Food Science, 2024, 45(18):315-325.
[56] Sicherer S H. Epidemiology of food allergy[J]. Journal of Allergy and Clinical Immunology, 2011, 127(3):594-602.
[57] Fuc E, Z otkowska D, Wróblewska B. Milk and meat allergens from Bos taurus β-lactoglobulin, α-casein, and bovine serum albumin: An in-vivo study of the immune response in mice[J]. Nutrients, 2019, 11(9):2095.
[58] Li S J, Nie L Q, Yang L, et al. “Fluorescence-wavelength” label-free POCT tandem with “fluorescence-photothermal” nanobody-immunosensor for detecting BSA and β-lactoglobulin[J]. Food Chemistry, 2024, 430:137019.
[59] Hourihane J O, Allen K J, Shreffler W G, et al. Peanut Allergen Threshold Study (PATS): Novel single-dose oral food challenge study to validate eliciting doses in children with peanut allergy[J]. Journal of Allergy and Clinical Immunology, 2017, 139(5):1583-1590.
[60] Geng Q, Zhang Y, Song M, et al. Allergenicity of peanut allergens and its dependence on the structure[J]. Comprehensive Reviews in Food Science and Food Safety, 2023, 22(2):1058-1081.
[61] Rabjohn P, Helm E M, Stanley J S, et al. Molecular cloning and epitope analysis of the peanut allergen Ara h 3[J]. The Journal of Clinical Investigation, 1999, 103(4):535-542.
[62] Packi K, Matysiak J, Matuszewska E, et al. Changes in serum protein-peptide patterns in atopic children allergic to plant storage proteins[J]. International Journal of Molecular Sciences, 2023, 24(2):1804.
[63] Yao C X, Hu Y Z, Liu Q, et al. Nanobody mediated dual-mode immunoassay for detection of peanut allergen Ara h 3[J]. Food Chemistry, 2024, 436:137679.
[64] Wang Y, Wu S H, Wang H T, et al. M13 bacteriophage based fluorescence immunoassay against food allergens of Ara h 3 and Mac i 1[J]. Food Chemistry, 2025, 469:142617.
[65] 张川. 花生和羽扇豆过敏原纳米抗体的制备及检测[D]. 天津: 天津科技大学, 2021.Zhang C. Preparation and detection of nanobodies against peanut and lucerne allergens[D]. Tianjin: Tianjin University of Science and Technology, 2021.
[66] Lin J F, Chang K L, Hsieh B S, et al. Development of validated sandwich ELISA for detecting peanut allergen Ara h 3 in food[J]. Food Chemistry, 2024, 445:138757.
[67] 杨艳芬, 段敏仙, 张碧蓉, 等. 澳洲坚果加工与产业副产物综合利用研究进展[J]. 中国油脂, 2024, 49(12):100-104.Yang Y F, Duan M X, Zhang B R, et al. Research progresses on the processing and comprehensive utilization of industrial by-products of Macadamia integrifolia[J]. China Oils and Fats, 2024, 49(12):100-104.
[68] De Knop K J, Hagendorens M M, Bridts C H, et al. Macadamia nut allergy: 2 case reports and a review of the literature[J]. Acta Clinica Belgica, 2010, 65(2):129-132.
[69] Hu Y Z, Wu S H, Wang Y, et al. Unbiased immunization strategy yielding specific nanobodies against Macadamia allergen of vicilin-like protein for immunoassay development[J]. Journal of Agricultural and Food Chemistry, 2021, 69(17):5178-5188.
[70] Hu Y Z, Zhang C, Yang F E, et al. Selection of specific nanobodies against lupine allergen lup an 1 for immunoassay development[J]. Foods, 2021, 10(10):2428.
[71] Jiao S J, Xie X X, He Z Y, et al. Lateral flow immunochromatographic assay for competitive detection of crustacean allergen tropomyosin using phage-displayed shark single-domain antibody[J]. Journal of Agricultural and Food Chemistry, 2024, 72(3):1811-1821.
[72] Smith G P. Filamentous fusion phage: Novel expression vectors that display cloned antigens on the virion surface[J]. Science, 1985, 228(4705):1315-1317.
[73] 廖源, 李淑慧, 胡川闽, 等. 真核细胞表达基因工程抗体的研究进展[J]. 医学研究杂志, 2011, 40(6):16-18.Liao Y, Li S H, Hu C M, et al. Research progress of eukaryotic cells expressing genetically engineered antibodies[J]. Journal of Medical Research, 2011, 40(6):16-18.
[74] Abdolvahab M H, Karimi P, Mohajeri N, et al. Targeted drug delivery using nanobodies to deliver effective molecules to breast cancer cells: The most attractive application of nanobodies[J]. Cancer Cell International, 2024, 24(1):67.
[75] de Keyser P, de Waard M, Jimidar I S M, et al. A nanobody-based microfluidic chip for fast and automated purification of protein complexes[J]. Lab on a Chip, 2024, 24(24):5421-5432.
[76] Yang Y Y, Tong C Y, Zhou R R, et al. Hinge-like paper-based dual-channel enzyme-free ratiometric fluorescent microfluidic platform for simultaneous visual detection of carbaryl and glyphosate[J]. Food Chemistry, 2024, 431:137127.