“药食同源”作为传统中医理论重要思想,可实现膳食“治未病”和机体稳态调节。在“健康中国”战略引领和全球功能食品需求剧增的双重驱动下,天麻、黄精、石斛、人参等药食同源资源中的多糖、皂苷、黄酮等活性成分因其优异的免疫调节、神经保护和代谢干预能力而备受关注[1-3]。然而,天然活性物质含量低、生物利用率差等问题严重制约了药食同源资源的大规模产业化应用。发酵工程通过特定微生物的酶解和代谢修饰,可将大分子前体转化为高生物活性小分子产物,显著增强生物活性。但药食同源发酵过程涉及菌群动态、底物代谢、多环境因素(温度、湿度、pH、溶氧等)复杂交互,依赖经验控制模式导致批次间质量差异大、产率波动显著,难以实现稳定生产[4-5]。
近年来,人工智能(artificial intelligence, AI)技术的快速发展为药食同源发酵系统智能化控制提供了突破路径。机器学习通过整合在线传感、光谱数据及过程历史数据,构建关键质量属性预测模型,实现实时在线优化,从而提高产品均一性、资源利用率和生产智能化水平[6-8]。本文系统综述AI技术在药食同源发酵控制领域的应用现状,包括发酵特性与控制难点、人工智能驱动的智能控制技术、典型应用场景等,旨在为传统食药产业化提供理论支撑与技术路线参考。
1 药食同源资源发酵特性与控制难点
1.1 基质特性与代谢网络的复杂性
药食同源资源含有较为致密的植物细胞壁,含有大量纤维素、半纤维素、果胶等抗营养因子,在发酵初期,微生物需要分泌胞外酶系降解这些大分子,该过程受诱导物、阻遏物及环境因子的协同调控[9];另外,药用成分也是经过许多复杂的次级代谢途径形成的,例如人参皂苷的形成路径有甲基赤藓醇磷酸(methylerythritol phosphate, MEP)、甲羟戊酸(mevalonic acid, MVA)等途径,随后经糖基化反应、氧化反应以及侧链修饰等多次反应最终生成,导致产物代谢途径复杂且难以获得产物[10]。除此之外,不同的菌种对于底物的选择性不一样,并且代谢流也会发生分支或者竞争,有的菌株会将底物先转化为生物量,而不是目标次级代谢产物,在这样复杂的代谢调控作用下,仅仅依靠简单的恒温、恒pH等参数控制难以实现目标成分富集[11-12]。
1.2 过程参数的强耦合与非线性
药食同源发酵过程是一个多变量、强耦合的动态系统。值得注意的是,固态发酵与液态发酵在AI技术应用适配性上存在显著差异,固态发酵基质存在气、液、固三相界面,传热传质不均,参数空间分布异质性强,传统传感器难以原位监测,故AI技术应用侧重于基于图像识别的形态分析与光谱技术的局部采样建模;而液态发酵体系混合相对均匀,参数均一性较好,更适宜基于常规参数[pH、溶解氧(dissolved oxygen,DO)等]建立动力学模型与软测量模型[13-14],微生物代谢产热与通风散热耦合,变量间非线性关系导致传统比例-积分-微分(proportional-integral-derivative, PID)控制在应对扰动时效果不佳。
1.3 关键质量指标监测的滞后性
对于药食同源发酵产品质量而言,决定其优劣的核心要素主要是产品中是否含有特定含量的活性成分(如人参皂苷、黄精多糖)以及是否有某些特定的风味指纹图谱。现有检测方法一般是采用HPLC、GC-MS等实验室内精密仪器,其过程包含采样、前处理和上机分析,检测过程耗时较长,通常需要数小时至数天,时间滞后问题严重,即使发现产物浓度过高或过低时,实时发酵环境已改变,难以及时反馈调节[15-16]。针对上述缺陷,需要建立基于可测的过程变量实现对产物品质的在线预测,这是实现智能控制的重要前提条件。
2 人工智能驱动的生物发酵智能控制技术
2.1 发酵过程的多层次传感与数据获取技术
实现药食同源发酵智能控制需建立“环境-代谢-形态”全方位感知系统。其中,环境传感器提供基础参数,光谱分析实现活性成分无损检测,机器视觉则量化菌丝形态,三者互补可打破信息黑箱。未来传感技术将向多模态融合、微型化、智能化发展,例如电子鼻与图像的集成可同时获取风味与形态信息,提升发酵监控的全面性。
2.1.1 常规参数的精密化与联网化
目前应用较广的是将高精度传感器与可编程逻辑控制器(programmable logic controller,PLC)、分散控制系统(distributed control system, DCS)集成到现代生物反应器上,实现秒级采集温度、湿度、pH、DO、通气量等参数,并利用物联网(internet of things, IoT)技术把数据汇集到云端,可进行远程操控和协同建模。其中,在药食同源资源发酵过程中,树莓派IoT平台通过每隔30 s采集1次pH、电导率和温度的数据,为后期AI模型提供数据基础[17]。
2.1.2 先进在线分析技术
近红外光谱(near-infrared spectroscopy, NIR)和拉曼光谱(raman spectroscopy, RS)无损定量地测定活性成分(人参皂苷、黄精多糖等)含量,可用于药食同源资源发酵过程中活性成分含量的实时监控[18-19];尾气分析可根据O2/CO2计算得到呼吸商(respiratory quotient, RQ),通过该值间接判断微生物的代谢情况及底物的利用率[20-21]。在发酵食品的研究中,结合尾气、偏最小二乘法(partial least squares, PLS)模型可以预测多糖含量以及菌体生长情况[22];活细胞传感(电容法、荧光探针)直接测定细胞密度和活力[23-24],得到发酵药食同源资源的生物学数据。
2.1.3 多模态融合与视觉智能赋能
“仿生+智能”的感知系统是指集合了电子鼻、电子舌、图像和光谱等多模态数据,采用计算机视觉等智能手段的一种系统。现有研究中,支持向量机(support vector machine,SVM)、随机森林(random forest,RF)模型在中小样本下表现稳定,通过集成电子鼻、多光谱、SVM/RF等传统模型在中小样本发酵阶段分类中表现稳定,常通过交叉验证确保模型可靠性;卷积神经网络(convolutional neural network, CNN)等深度学习模型则擅长处理大规模图像数据,通过非侵入式图像分析预测发酵程度与活性物质富集。例如,在食品发酵研究中,利用IoT平台采集图像,经CNN提取特征并结合RF极端梯度提升(XGBoost)集成模型,实现酸度精准预测(R2>0.95),有效降低人工检测成本[17]。但是融合多模态数据后如何做到各路数据同步采集,如何将获取的信息转化成有效的特征参量,并对海量信息进行压缩式存储、抽取式提取来建立准确的机器学习模型等都是目前面临的巨大挑战。上述多层次传感技术的具体性能特征与适用范围见表1。
表1 药食同源资源发酵过程中常用传感技术分类及其特性对比
Table 1 Classification and comparison of characteristics of common sensing technologies used in the fermentation process of medicinal and edible homologous resources
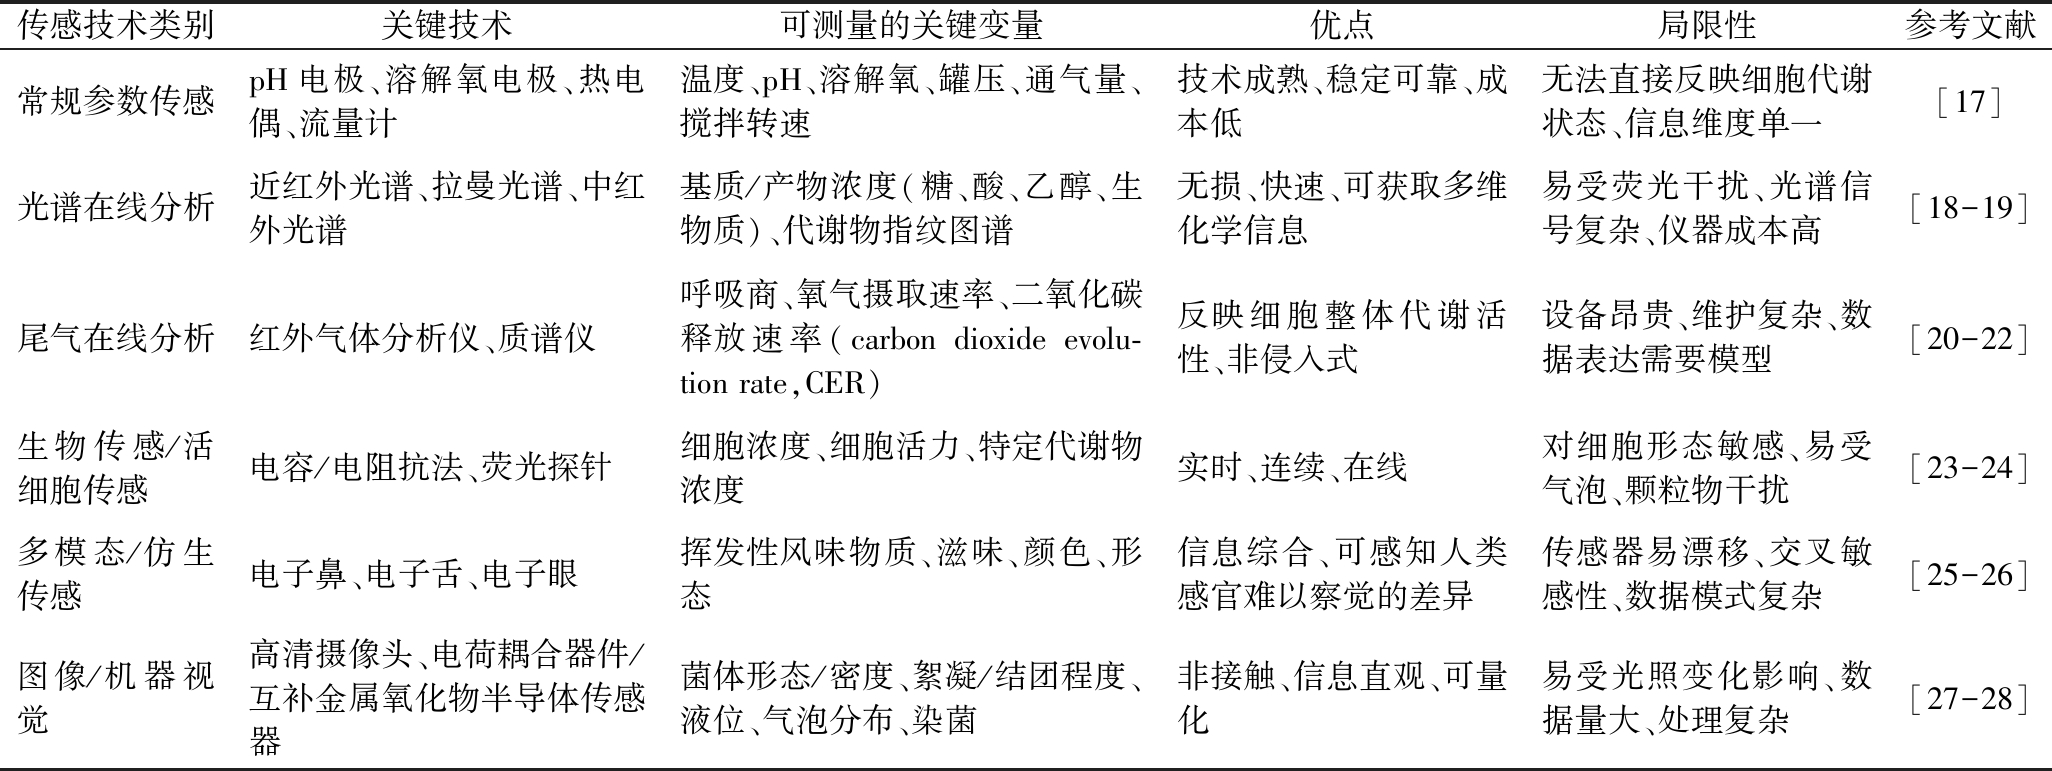
传感技术类别关键技术可测量的关键变量优点局限性参考文献常规参数传感pH电极、溶解氧电极、热电偶、流量计温度、pH、溶解氧、罐压、通气量、搅拌转速技术成熟、稳定可靠、成本低无法直接反映细胞代谢状态、信息维度单一[17]光谱在线分析近红外光谱、拉曼光谱、中红外光谱基质/产物浓度(糖、酸、乙醇、生物质)、代谢物指纹图谱无损、快速、可获取多维化学信息易受荧光干扰、光谱信号复杂、仪器成本高[18-19]尾气在线分析红外气体分析仪、质谱仪呼吸商、氧气摄取速率、二氧化碳释放速率(carbon dioxide evolu-tion rate,CER)反映细胞整体代谢活性、非侵入式设备昂贵、维护复杂、数据表达需要模型[20-22]生物传感/活细胞传感电容/电阻抗法、荧光探针细胞浓度、细胞活力、特定代谢物浓度实时、连续、在线对细胞形态敏感、易受气泡、颗粒物干扰[23-24]多模态/仿生传感电子鼻、电子舌、电子眼挥发性风味物质、滋味、颜色、形态信息综合、可感知人类感官难以察觉的差异传感器易漂移、交叉敏感性、数据模式复杂[25-26]图像/机器视觉高清摄像头、电荷耦合器件/互补金属氧化物半导体传感器菌体形态/密度、絮凝/结团程度、液位、气泡分布、染菌非接触、信息直观、可量化易受光照变化影响、数据量大、处理复杂[27-28]
2.2 基于机器学习的发酵过程建模与预测
在药食同源资源的发酵过程中,以皂苷、多糖、黄酮为代表的活性成分是重要质量属性指标,但主要是依靠离线实验室检测确定其含量,不能满足实时在线反馈控制要求。“软测量”技术能够通过构建易测辅助变量(温度、pH、溶解氧、近红外光谱、尾气数据等)实现难测主导变量(活性成分含量、菌体生物量)的非线性映射模型,对发酵状态进行实时感知与预测,得到了广泛应用。对于药食同源发酵差异性,常见建模方法主要有以下4种,详见表2。
表2 药食同源发酵过程常用机器学习建模方法对比
Table 2 Comparison of common machine learning modeling methods used in the fermentation process of medicinal and edible homologous resources
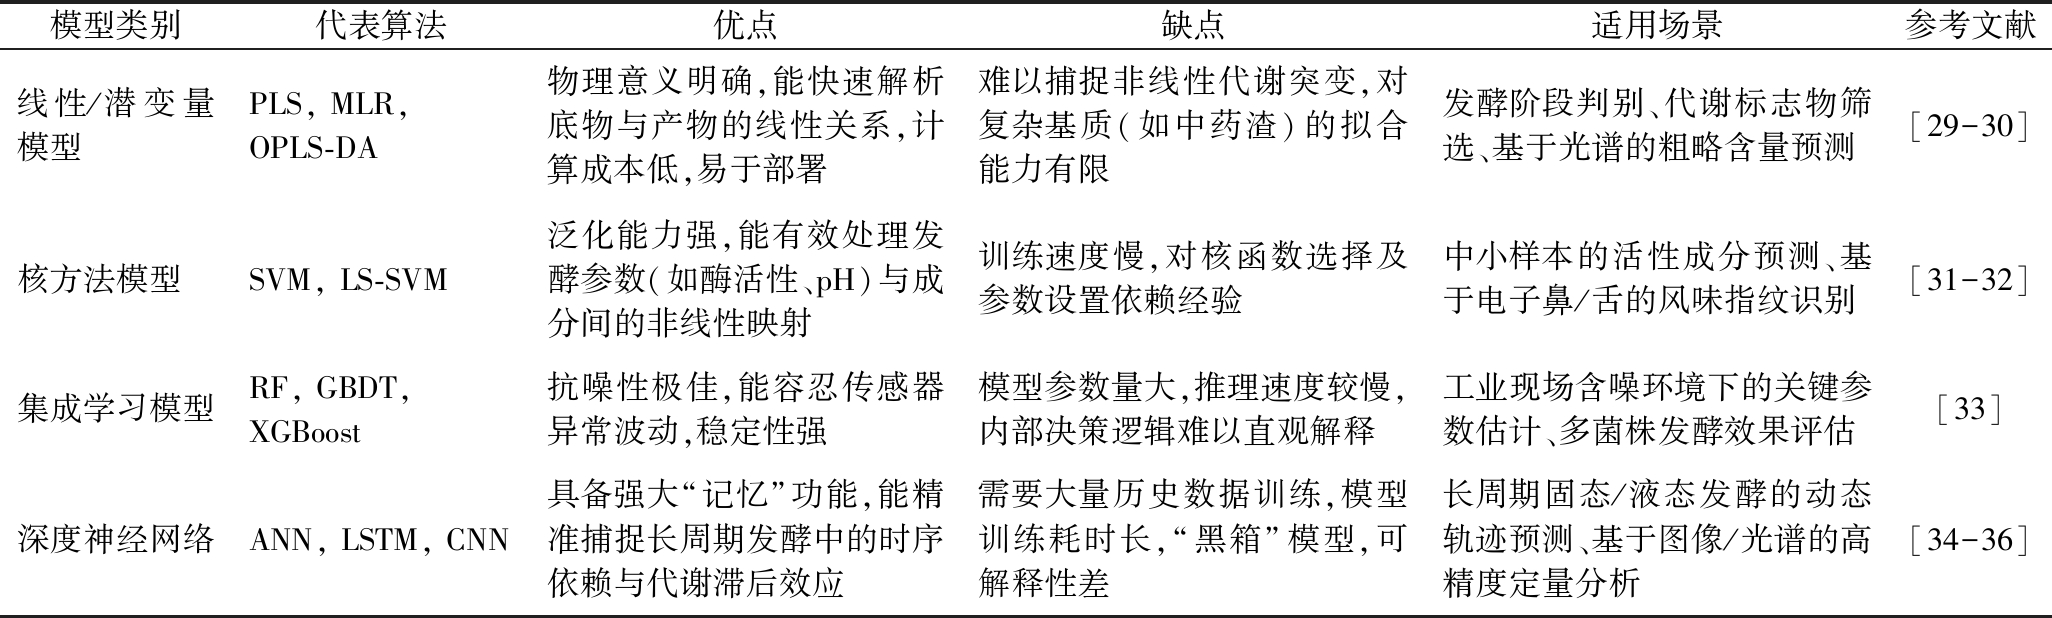
模型类别代表算法优点缺点适用场景参考文献线性/潜变量模型PLS, MLR, OPLS-DA物理意义明确,能快速解析底物与产物的线性关系,计算成本低,易于部署难以捕捉非线性代谢突变,对复杂基质(如中药渣)的拟合能力有限发酵阶段判别、代谢标志物筛选、基于光谱的粗略含量预测[29-30]核方法模型SVM, LS-SVM泛化能力强,能有效处理发酵参数(如酶活性、pH)与成分间的非线性映射训练速度慢,对核函数选择及参数设置依赖经验中小样本的活性成分预测、基于电子鼻/舌的风味指纹识别[31-32]集成学习模型RF, GBDT, XGBoost抗噪性极佳,能容忍传感器异常波动,稳定性强模型参数量大,推理速度较慢,内部决策逻辑难以直观解释工业现场含噪环境下的关键参数估计、多菌株发酵效果评估[33]深度神经网络ANN, LSTM, CNN具备强大“记忆”功能,能精准捕捉长周期发酵中的时序依赖与代谢滞后效应需要大量历史数据训练,模型训练耗时长,“黑箱”模型,可解释性差长周期固态/液态发酵的动态轨迹预测、基于图像/光谱的高精度定量分析[34-36]
2.2.1 线性/潜变量模型
适用于小样本和快筛,如用PLS、偏最小二乘判别分析(orthogonal partial least squares discriminant analysis, OPLS-DA)为代表的模型,是目前应用较多的聚类分析方法,该法擅长处理高维共线性的数据。孙梦梅等[29]运用OPLS-DA研究不同发酵阶段药食同源资源的代谢物谱,筛选出区分不同发酵阶段的重要差异成分,为规范中药发酵炮制工艺、制订数字化饮片质量标准提供重要理论依据。Racioppo等[30]将计算机视觉获取的菌丝体的形态特征与PLS回归模型结合,构建低成本的发酵过程在线监测方法,能实现发酵终点的快速判定。
2.2.2 核方法模型
可以提高小规模样本泛化能力,在中等样本量、较明显的非线性关系下非常适用,可用于代替依靠感官品评的传统质量检测方法。Tan等[31]基于最小二乘支持向量机(least squares support vector machine, LS-SVM)算法与电子鼻得到的风味指纹图谱建立了判别模型,不仅能准确判断发酵程度,还可根据比例推断样品多糖含量和酶活性;Urtubia等[32]利用支持向量机识别异常发酵过程,有效提高检测精度。
2.2.3 集成学习模型
适应复杂工业环境是解决复杂多扰动药食同源发酵的主流工程途径,Du等[33]运用随机森林-粒子群优化(random forest-particle swarm optimization, RF-PSO)混合模型对黑芝麻籽酶解过程进行了多目标优化,在对黑芝麻籽酶解产物进行模拟筛选后确定8个抑制活性高的新肽段,并对其安全性与功效性予以验证,进一步说明集成学习对于活性成分定向挖掘与工艺优化有很好的适用性。
2.2.4 深度神经网络
具有强维特征提取能力的长短期记忆网络(long short-term memory, LSTM)尤其适合于天麻、人参、冬虫夏草等长周期发酵的动态建模,赵琛等[34]采用人工神经网络(artificial neural network, ANN)、PLS、主成分回归分析(principal component regression, PCR)与ANN对比了菌体发酵冬虫夏草氨基酸含量的检测值,发现ANN模型预测精度最高;Hua等[35]提出了随机森林和改进的HarrisHawks优化算法结合LSTM的软传感器模型,剔除了待测光谱中的冗余特征,并且可以调整超参数,实现发酵过程中药食同源资源复杂体系内重要生物参数测量的高精度与实时化,克服了传统的模型难以刻画复杂动态过程的问题。Zhou等[36]提出基于注意力机制的发酵关键参数预测模型,提升了时序数据的特征提取能力。
2.3 基于强化学习的发酵优化决策与控制
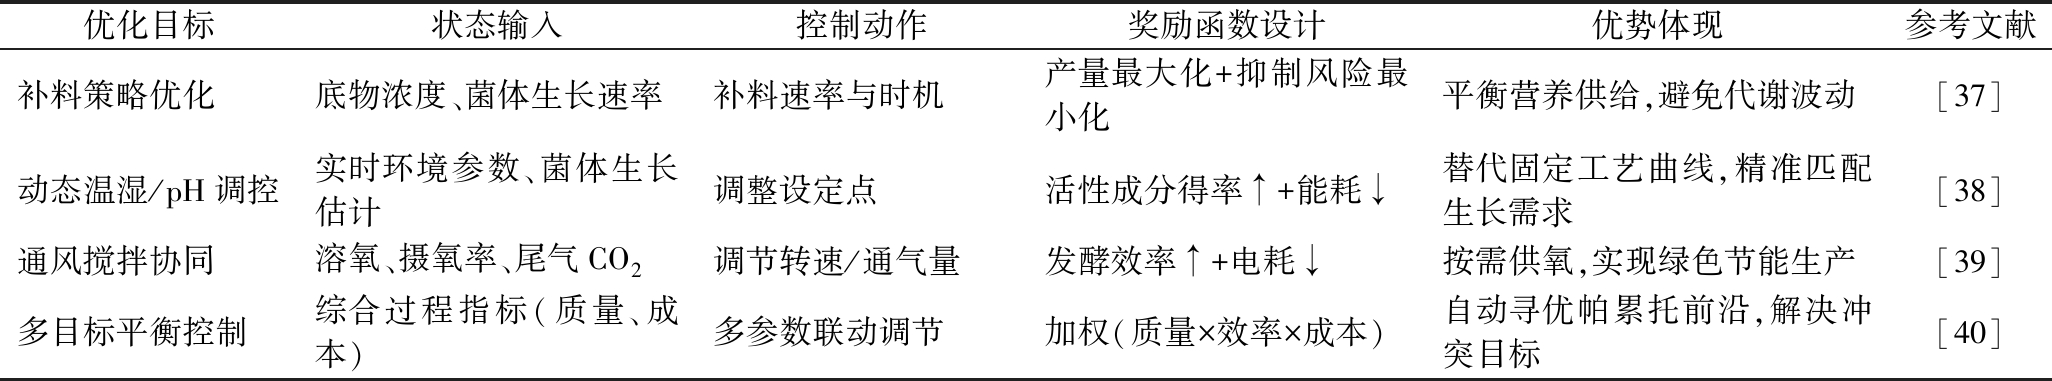
强化学习(reinforcement learning, RL)聚焦于发酵过程的决策与优化,针对药食同源发酵中的强非线性、时变性及批次差异,通过模拟试错学习过程,在动态环境中寻找最优控制策略,实现质量、产量与能耗的多目标平衡。RL基于“状态感知-策略调整-效果反馈”构建闭环控制逻辑,实现对原料波动的自适应调节。在补料策略中,实时根据代谢状态反馈调整底物,避免营养匮乏或底物抑制;在环境控制中,根据菌体生长阶段智能调整温度、pH和通气量等参数。RL已展现出优于传统PID控制的潜力,正逐步向工业迁移,典型应用模式如表3所示。
表3 强化学习在药食同源发酵控制中的典型应用模式
Table 3 Typical application modes of reinforcement learning in the control of fermentation of medicinal and edible homologous resources
注:↑表示升高;↓表示降低。
优化目标状态输入控制动作奖励函数设计优势体现参考文献补料策略优化底物浓度、菌体生长速率补料速率与时机产量最大化+抑制风险最小化平衡营养供给,避免代谢波动[37]动态温湿/pH调控实时环境参数、菌体生长估计调整设定点活性成分得率↑+能耗↓替代固定工艺曲线,精准匹配生长需求[38]通风搅拌协同溶氧、摄氧率、尾气CO2调节转速/通气量发酵效率↑+电耗↓按需供氧,实现绿色节能生产[39]多目标平衡控制综合过程指标(质量、成本)多参数联动调节加权(质量×效率×成本)自动寻优帕累托前沿,解决冲突目标[40]
分析典型应用研究,Sodiwal等[37]在Matlab平台开发RL自适应控制策略,验证了提高发酵效率和产量的优越性;针对模型与实际过程差异,Rajasekhar等[38]采用双延迟深度确定性策略梯度(twin delayed deep deterministic policy gradient,TD3)算法优化生物反应器关键控制参数,提升系统鲁棒性;针对多变量耦合控制问题,Panjapompon等[39]运用深度确定性策略梯度(deep deterministic policy gradient,DDPG)算法解决pH模型耦合问题,缩短控制时间,减少超调量;Li等[40]将发酵动力学机理融入OpenAI Gym环境,使RL算法逼近发酵过程控制帕累托前沿(Pareto front),为平衡产量与成本提供量化依据。RL通过“状态感知-策略调整-效果反馈”闭环,解决了药食同源发酵的强非线性与批次差异问题。然而,RL在工业应用中仍面临奖励函数设计复杂、环境模型不准确的问题,未来需结合数字孪生技术,提升RL的环境建模精度。
2.4 AI驱动药食同源发酵智能控制系统总体架构
针对药食同源发酵过程的复杂性与控制难点,本文构建了“AI驱动药食同源发酵智能控制系统”(图1),该架构涵盖感知、建模与决策三层,遵循问题导向的设计逻辑:针对过程参数强耦合与监测滞后难题,感知层融合常规传感器、光谱与机器视觉,通过多模态高频采集打破信息黑箱;鉴于基质特性复杂与关键指标在线测量瓶颈,建模层采用机理与数据驱动混合策略,在有限样本下兼顾非线性拟合能力与可解释性;针对批次间质量差异大的工业化痛点,决策层引入强化学习算法,利用在线交互自适应优化策略,有效克服原料波动与过程扰动。
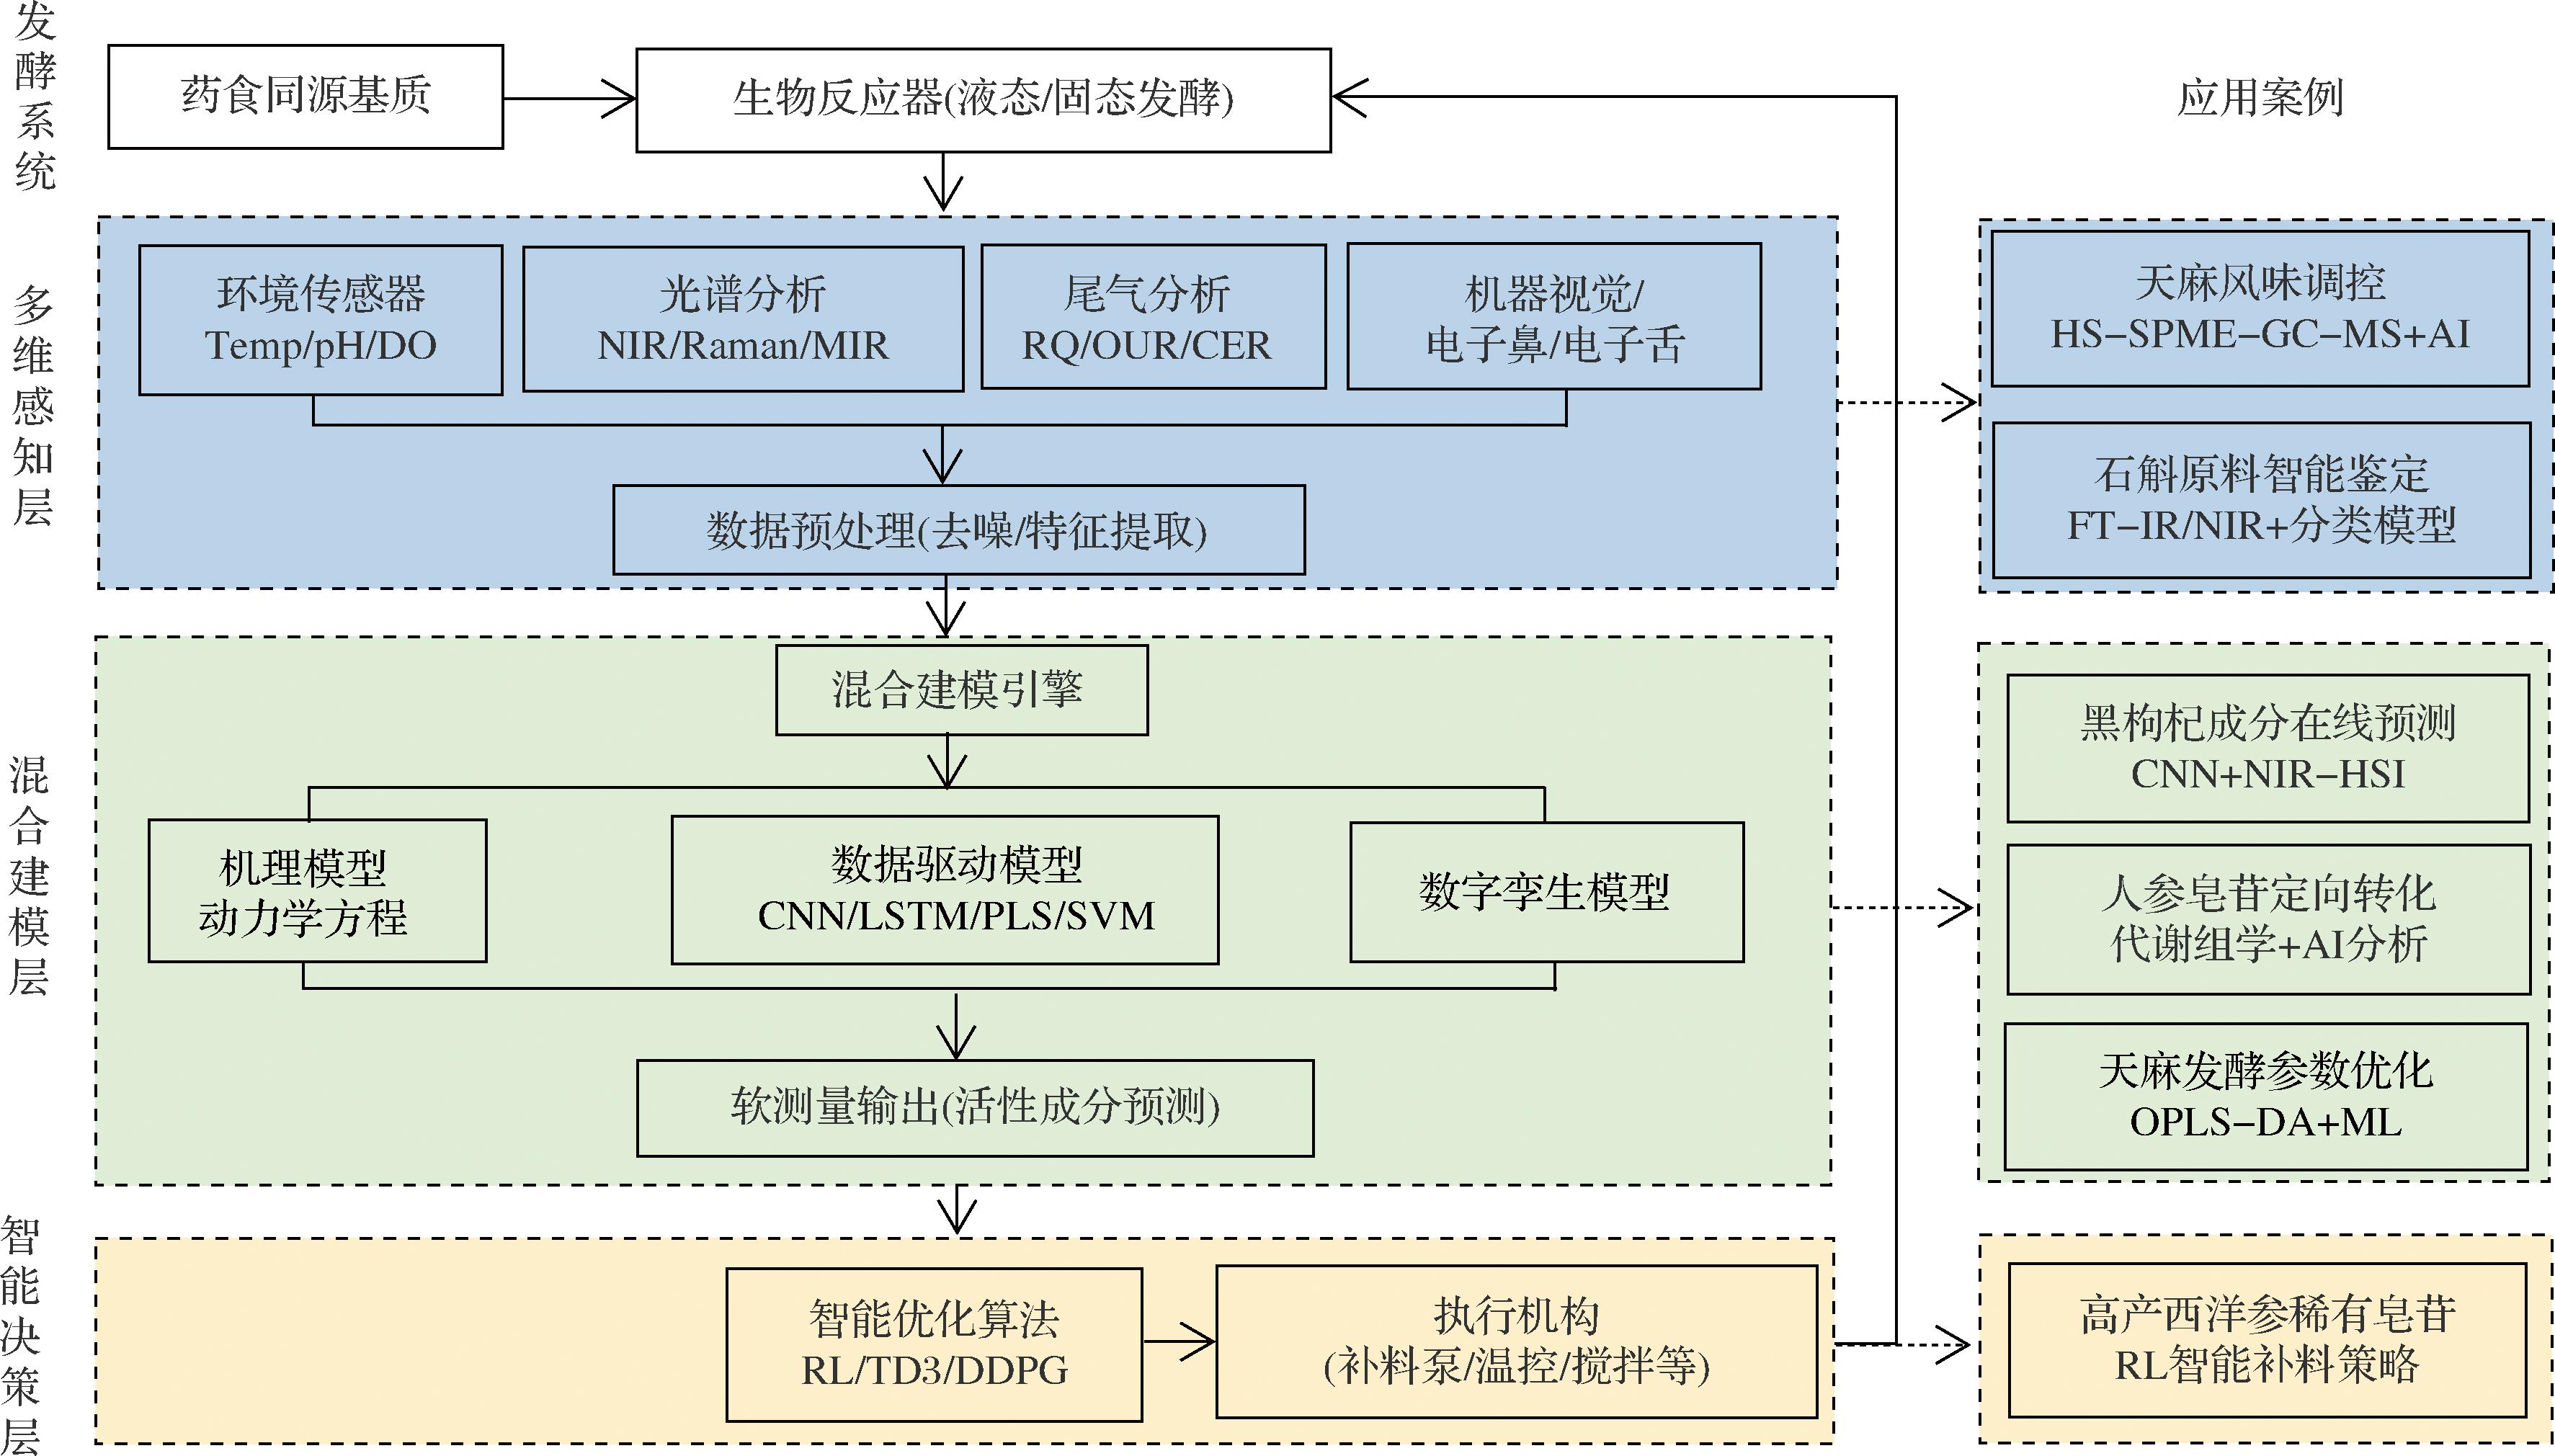
图1 AI驱动药食同源发酵智能控制系统总体架构
Fig.1 Overall architecture of AI-driven intelligent control system for the fermentation of medicinal and edible homologous resources
值得注意的是,为实现上述层面的深度集成,该架构引入了数字孪生技术,通过构建与物理实体映射的虚拟模型,实现了发酵过程虚实交互,进一步解决了传统控制中模型失真问题。目前,有研究者构建了人工智能数字孪生线程,通过神经网络模式识别增强实验数据,实现预测和优化相关工艺结果[41];在生物发酵领域,混合建模被认为是实现数字孪生的关键技术,能够有效应对生物制药环境的异质性、复杂性和不确定性挑战[42]。以上案例为药食同源发酵领域数字孪生技术的应用提供了重要技术参考和实践经验。
3 AI在药食同源发酵中的典型应用与案例分析
人工智能助力药食同源资源的发酵已进入“数据驱动、智能优化”的发展阶段,并在已有研究的基础之上进行发酵过程相关核心算法研究。分析天麻、黄精、石斛等典型药食同源资源的AI应用,汇总如表4所示。主要包括三大核心应用方向:菌株智能筛选与匹配、工艺动态优化、代谢机制解析。
表4 AI在药食同源资源发酵中的典型应用案例
Table 4 Typical application cases of artificial intelligence in the fermentation of medicinal and edible homologous resources
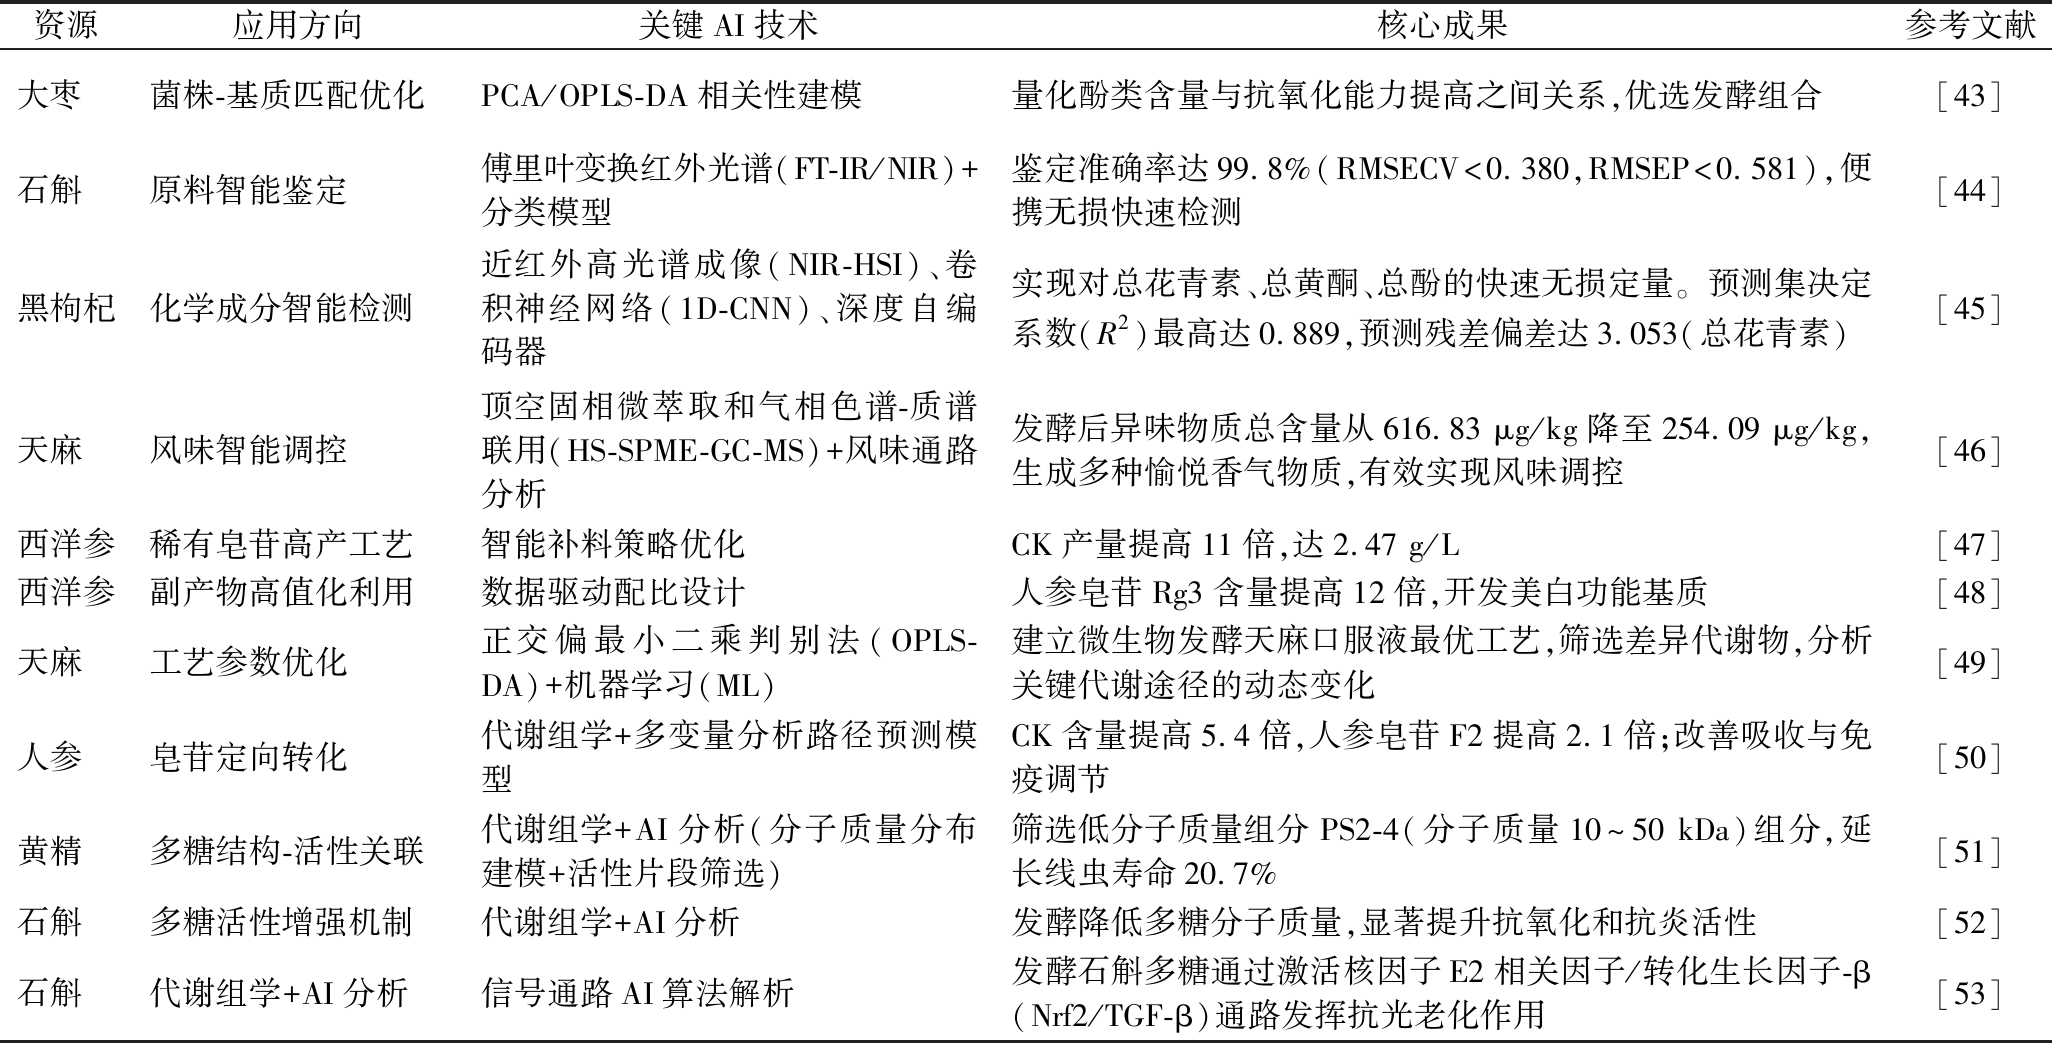
资源应用方向关键AI技术核心成果参考文献大枣菌株-基质匹配优化PCA/OPLS-DA相关性建模量化酚类含量与抗氧化能力提高之间关系,优选发酵组合[43]石斛原料智能鉴定傅里叶变换红外光谱(FT-IR/NIR)+分类模型鉴定准确率达99.8%(RMSECV<0.380,RMSEP<0.581),便携无损快速检测[44]黑枸杞化学成分智能检测近红外高光谱成像(NIR-HSI)、卷积神经网络(1D-CNN)、深度自编码器实现对总花青素、总黄酮、总酚的快速无损定量。预测集决定系数(R2)最高达0.889,预测残差偏差达3.053(总花青素)[45]天麻风味智能调控顶空固相微萃取和气相色谱-质谱联用(HS-SPME-GC-MS)+风味通路分析发酵后异味物质总含量从616.83 μg/kg降至254.09 μg/kg,生成多种愉悦香气物质,有效实现风味调控[46]西洋参稀有皂苷高产工艺智能补料策略优化CK产量提高11倍,达2.47 g/L[47]西洋参副产物高值化利用数据驱动配比设计人参皂苷Rg3含量提高12倍,开发美白功能基质[48]天麻工艺参数优化正交偏最小二乘判别法(OPLS-DA)+机器学习(ML)建立微生物发酵天麻口服液最优工艺,筛选差异代谢物,分析关键代谢途径的动态变化[49]人参皂苷定向转化代谢组学+多变量分析路径预测模型CK含量提高5.4倍,人参皂苷F2提高2.1倍;改善吸收与免疫调节[50]黄精多糖结构-活性关联代谢组学+AI分析(分子质量分布建模+活性片段筛选)筛选低分子质量组分PS2-4(分子质量10~50 kDa)组分,延长线虫寿命20.7%[51]石斛多糖活性增强机制代谢组学+AI分析发酵降低多糖分子质量,显著提升抗氧化和抗炎活性[52]石斛代谢组学+AI分析信号通路AI算法解析发酵石斛多糖通过激活核因子E2相关因子/转化生长因子-β(Nrf2/TGF-β)通路发挥抗光老化作用[53]
3.1 基质-菌株智能筛选与匹配
在药食同源发酵中,基质-菌株适配性直接决定转化效率。传统筛选方式是将大量菌株随机挑选后放入培养基中,耗费大量人力和物力,周期很长,而且容易错误筛选;而基于AI的“表型-基因型-代谢型”多维相关模型可以大幅提升高产菌株和最优发酵组合的筛选速率。
大枣的菌株-基质匹配:基于发酵过程中复杂的酚类物质代谢,以主成分分析(principal component analysis, PCA)和OPLS-DA建立相关性模型,筛选出植物乳植杆菌(Lactiplantibacillus plantarum) Z-1为最优菌株,发酵后总酚含量提高42.7%,DPPH自由基清除率提升65.3%,筛选周期从30 d缩短至7 d,效率提升76.7%[43]。
石斛原料的智能鉴定:原料品质的一致性是发酵稳定性的基础保障,在石斛原料处理端,可通过傅里叶变换红外光谱(Fourier transform infrared spectroscopy, FT-IR)/NIR和分类模型实现快速无损鉴定,Zhao等[44]研究采用Kennard-Stone算法划分训练集与测试集,通过200次置换检验,模型训练集与测试集准确率均达99.8%,交叉验证均方根误差(root mean square error of cross-validation, RMSECV)低于0.380,预测均方根误差(root mean square error of prediction, RMSEP)低于0.581,检测时间从2 h缩短至3 min,为后期发酵工艺规范提供准确数据输入。
黑枸杞化学成分智能预测:Zhang等[45]构建了基于近红外高光谱成像(near-infrared hyperspectral imaging, NIR-HSI)与深度学习(one-dimensional convolutional neural network, 1D-CNN)的智能预测模型,成功实现对总花青素、总黄酮及总酚含量的精准定量分析。其中,对总花青素的预测精度最佳,预测集决定系数(R2)和预测残差偏差(residual predictive deviation, RPD)分别达到0.889和3.053,模型性能媲美传统PLS/LS-SVM。
3.2 工艺动态优化
针对药食同源资源发酵过程中多变量耦合等特点,AI技术引入动态优化策略,替代传统单因素试验或正交试验,实现对风味、得率的精细化控制。
天麻的风味智能调控:天麻一般都带有令人不悦的特征性风味,因而限制了在食物中的应用。Liu等[46]研究利用感官评价、电子鼻及多种谱学联用技术,基于气味活性值(odor activity value, OAV)锁定关键异味物质,解析其代谢通路。结果表明,发酵后异味物质总含量从616.83 μg/kg降至254.09 μg/kg,关键异味成分(如乙偶姻、间甲酚)被有效去除,同时生成多种愉悦香气物质。
西洋参稀有皂苷高产工艺:西洋参中的稀有皂苷(如Compound K,CK)生物活性极高但天然含量低。利用智能补料策略优化算法,通过对补料时机和速率的动态调整,解决了底物抑制与产物反馈的矛盾,使得CK产量提升了11倍,达到2.47 g/L,远高于传统恒速补料法(0.22 g/L)。同时,基于数据驱动的配比设计,还实现了副产物的高值化利用,使人参皂苷Rg3质量浓度从0.08 g/L增至0.96 g/L,提升至原来的12倍[47-48],成功开发出具有美白功能的新型基质。
3.3 代谢机制解析与活性成分定向转化
AI结合多组学技术成功将发酵过程从“黑箱”转化为可解析的机制,通过精准定位关键代谢路径和活性成分,实现了活性物质的高效定向转化,并揭示其作用机制,为药食同源产品的功能开发和质量控制提供了科学依据。
天麻发酵代谢机制解析:Wang等[49]利用气相色谱-飞行时间质谱联用(gas chromatography-time of flight-mass spectrometry, GC-TOF-MS)非靶向代谢组学技术,基于OPLS-DA模型,以投影变量重要性(variable importance in projection, VIP)>1且P<0.05筛选出32种差异代谢物,并通过影响值>0.1及P<0.05确定14条关键代谢通路,阐明了发酵中碳水化合物降解、有机酸与肽类富集规律,实现过程机制可视化,为工艺优化提供依据。
人参皂苷的定向转化:人参皂苷的生物转化过程较为复杂,研究者结合代谢组学数据及机器学习路径预测模型准确找到糖苷水解酶作用靶点。人参皂苷CK质量浓度从0.52 g/L提升至3.33 g/L,提高5.4倍;人参皂苷F2含量从0.43 g/L提升至1.33 g/L,提高2.1倍;人体生物利用度提高4.8倍,淋巴细胞增殖率提升82%,具有较高免疫调节活性[50]。
黄精多糖的结构-活性关联:黄精经发酵后多糖的分子质量变小、活性增强,利用代谢组学和分子质量分布模型组合的AI方法筛选出分子质量为10~50 kDa的关键活性组分PS2-4,可有效提升线虫寿命20.7%,羟自由基清除能力提升3.6倍,为精准控制发酵终点提供理论依据[51]。
石斛多糖抗光老化机制:通过信号通路AI算法分析发现发酵多糖激活核因子E2相关因子2(nuclear factor erythroid 2-related factor 2,Nrf2)/转化生长因子-β(transforming growth factor-beta,TGF-β)通路发挥抗光老化作用。实验数据表明Nrf2表达量上调2.8倍,TGF-β1表达量下调65%,胶原蛋白I含量增加1.9倍,MDA含量降低58%,验证了发酵多糖功效,确定了功能因子研发方向[52-53]。
3.4 典型案例横向对比与技术适配性规律
基于对药食同源资源典型应用案例的系统分析,可提炼出AI方法与药食同源资源发酵特性的适配性规律,具体表现为以下维度:(1)图像识别与机器视觉技术适用于具有显著形态学特征或直观变化指标的发酵体系。例如,在黄精固态发酵过程中,针对菌丝生长状态及发酵床色泽变化等直观特征,CNN模型能够高效提取图像特征,实现对发酵进程的非侵入式精准监测。(2)针对人参皂苷、黑枸杞花青素、石斛多糖等已知关键活性成分,NIR与拉曼光谱结合机器学习模型可实现快速无损检测;而代谢组学数据与AI分析联用,则能有效解析天麻素、黄精多糖等活性组分的转化机制与功效通路。(3)RL等动态优化算法适用于工艺参数敏感度高且控制目标多元的复杂过程。在西洋参稀有皂苷的长周期发酵中,针对补料策略与环境参数的强耦合特性,RL算法通过自适应优化多变量控制策略,成功突破了传统经验控制的上限。此外,在天麻发酵中,基于OAV锁定关键异味物质并解析代谢通路,实现了风味智能调控。(4)集成学习与小样本建模方法适用于数据样本有限、影响因素复杂的初期探索阶段。如大枣发酵菌株筛选中,利用多维相关模型缩短筛选周期,提升功效成分含量。
4 结论与展望
本文总结了人工智能技术在药食同源资源发酵技术中的应用现状,证明AI已成为破解传统发酵“黑箱”难题、引领产业升级到“智能制造”的核心技术。基于“多维感知软测量建模动态决策”闭环技术体系,有效解决了传统经验控制中变量耦合强度高、响应滞后长及批次稳定性差的问题。实践表明,AI可实现菌株智能筛选精准匹配药食同源资源;通过工艺动态优化定向去除天麻异味、提高人参皂苷产量;解析代谢机制阐明黄精多糖和石斛多糖构效关系,提升产品活性成分得率、改善感官品质、挖掘药效机制。
然而,AI应用于药食同源发酵领域仍面临“小样本建模难”“模型可解释性弱”等关键挑战。目前,针对小样本数据限制问题,迁移学习与生成对抗网络技术被用于天然产物药物研究与活性物质等领域跨域迁移先验知识[54],并生成虚拟样本以扩充训练数据;针对可解释性问题,借鉴功能性食品营养评估方法学[55-56],引入SHAP与LIME等局部解释技术量化特征贡献度,提升AI模型在药食同源配方优化和发酵工艺调控中的可信度。
未来,AI技术突破方向可考虑(1)“机理+数据”研究。将微生物生长动力学方程(如Logistic方程、底物抑制模型)作为约束项嵌入神经网络架构,或利用物理信息神经网络直接学习微分方程,从而在有限数据下构建更可靠、可解释的发酵过程数字孪生模型,解决纯数据驱动模型泛化能力弱的问题;(2)“由点到面”实施。现有研究多集中于单罐发酵过程优化。未来应扩展至原料预处理、发酵过程、下游分离纯化乃至车间级调度控制。例如,构建覆盖“原料智能鉴伪-发酵状态自适应调控-产物在线提取预测”的端到端AI管控平台,最终实现药食同源产品全流程的质量追溯与优化;(3)跨学科协同创新。深化“AI+合成生物学+过程工程”交叉融合,利用AI加速挖掘和设计高效催化酶元件,定向改造微生物底盘细胞以提升活性成分合成能力。同时,结合强化学习动态优化发酵环境,与合成生物学设计的智能基因回路(如营养感应、产物反馈抑制解除)形成“设计-优化”闭环,共同驱动药食同源资源向“精准设计、高效制造”的新范式演进。
[1] Chen S W, Zhou Y, Li H L, et al. Saponins based on medicinal and edible homologous plants: Biological activity, delivery systems and its application in healthy foods[J]. Food Bioengineering, 2024, 3(4):464-481.
[2] 段昊, 闫文杰. 天麻生物活性成分及功效研究进展[J]. 食品科学, 2023, 44(17):332-340.Duan H, Yan W J. Research progress on bioactive components in Gastrodia elata bl.and their biological activity[J]. Food Science, 2023, 44(17):332-340.
[3] Ye T, Xu M T, Fang J P, et al. Antidepressant-like active ingredients and their related mechanisms of functional foods or medicine and food homologous products[J]. Digital Chinese Medicine, 2023, 6(1):9-27.
[4] 孙慧峰, 朱钧溢, 国立东, 等. 乳酸菌生物转化药食同源植物活性成分研究进展[J]. 食品工业科技, 2022, 43(7):474-481.Sun H F, Zhu J Y, Guo L D, et al. Research progress on biotransformation of lactic acid bacteria on active ingredients from homologous plants of medicine and food[J]. Science and Technology of Food Industry, 2022, 43(7):474-481.
[5] 饶智, 陈彦坤, 刘斌, 等. “药食同源”植物酵素研究进展[J]. 食品与发酵工业, 2020, 46(9):290-294.Rao Z, Chen Y K, Liu B, et al. Research progress on “herb-food homology” plant Jiaosu[J]. Food and Fermentation Industries, 2020, 46(9):290-294.
[6] Barredo Arrieta A, Díaz-Rodríguez N, Del Ser J, et al. Explainable Artificial Intelligence (XAI): Concepts, taxonomies, opportunities and challenges toward responsible AI[J]. Information Fusion, 2020, 58:82-115.
[7] Arulkumaran K, Deisenroth M P, Brundage M, et al. Deep reinforcement learning: A brief survey[J]. IEEE Signal Processing Magazine, 2017, 34(6):26-38.
[8] Huang M H, Rust R T. Artificial intelligence in service[J]. Journal of Service Research, 2018, 21(2):155-172.
[9] de Souza T S P, Kawaguti H Y. Cellulases, hemicellulases, and pectinases: Applications in the food and beverage industry[J]. Food and Bioprocess Technology, 2021, 14(8):1446-1477.
[10] Rico J, Duquesne K, Petit J L, et al. Exploring natural biodiversity to expand access to microbial terpene synthesis[J]. Microbial Cell Factories, 2019, 18(1):23.
[11] Lilja E E, Johnson D R. Segregating metabolic processes into different microbial cells accelerates the consumption of inhibitory substrates[J]. The ISME Journal, 2016, 10(7):1568-1578.
[12] Li L, Wang L, Fan W X, et al. The application of fermentation technology in traditional Chinese medicine: A review[J]. The American Journal of Chinese Medicine, 2020, 48(4):899-921.
[13] Finkler A T J, Weber M Z, Fuchs G A, et al. Estimation of heat and mass transfer coefficients in a pilot packed-bed solid-state fermentation bioreactor[J]. Chemical Engineering Journal, 2021, 408:127246.
[14] P M, M S, P V, et al. Intelligent pH regulation with an adaptive neuro-fuzzy PI controller in Saccharomyces cerevisiae bioreactors for improved invertase production[C]. 2025 IEEE Silchar Subsection Conference (SILCON). IEEE, 2025:1-6.
[15] Müller J, Beckers M, Mußmann N, et al. Elucidation of auxotrophic deficiencies of Bacillus pumilus DSM 18097 to develop a defined minimal medium[J]. Microbial Cell Factories, 2018, 17(1):106.
[16] Pontius K, Semenova D, Silina Y E, et al. Automated electrochemical glucose biosensor platform as an efficient tool toward on-line fermentation monitoring: Novel application approaches and insights[J]. Frontiers in Bioengineering and Biotechnology, 2020, 8:436.
[17] Adeleke I, Adebo O A, Nwulu N. Leveraging IoT and machine learning for smart fermentation of amasi: A predictive framework for acidity control[J]. Journal of Agriculture and Food Research, 2025, 24:102409.
[18] Croce R, Malegori C, Oliveri P, et al. Prediction of quality parameters in straw wine by means of FT-IR spectroscopy combined with multivariate data processing[J]. Food Chemistry, 2020, 305:125512.
[19] Wang S, Hu X Z, Liu Y Y, et al. Direct authentication and composition quantitation of red wines based on Tri-step infrared spectroscopy and multivariate data fusion[J]. Food Chemistry, 2022, 372:131259.
[20] Alarcon C, Shene C. Fermentation 4.0, a case study on computer vision, soft sensor, connectivity, and control applied to the fermentation of a thraustochytrid[J]. Computers in Industry, 2021, 128:103431.
[21] Gehan O, Pigeon E, Menard T, et al. Dissolved oxygen level output feedback control based on discrete-time measurements during a Pseudomonas putida mt-2 fermentation[J]. Journal of Process Control, 2019, 79:29-40.
[22] Zhao S G, Jiao T H, Adade S Y S, et al. Digital twin for predicting and controlling food fermentation: A case study of kombucha fermentation[J]. Journal of Food Engineering, 2025, 393:112467.
[23] 刘玉伟, 黄明志, 周勇, 等. 电容法在线活细胞量传感器在黑曲霉带渣发酵生产柠檬酸中的应用[J]. 食品与发酵工业, 2010, 36(12):1-5.Liu Y W, Huang M Z, Zhou Y, et al. Study on online capacitance viable-cell mass monitoring in citric acid fermentation by Aspergillus niger in complex medium with corn dregs[J]. Food and Fermentation Industries, 2010, 36(12):1-5.
[24] Adeyma Y A. Advances in Sensor and Sampling Technologies in Fermentation and Mammalian Cell Culture[M]. 3rd ed. Manual of Industrial Microbiology and Biotechnology, 2010: 700-718.
[25] Syahputra T S, Ihsan N, Kombo K O, et al. Integration of low-cost multispectral sensors and electronic nose for enhanced fermentation monitoring in tempeh production[J]. Journal of Food Measurement and Characterization, 2025, 19(5):3687-3701.
[26] Wang T, Zhang H X, Wu Y, et al. Classification and concentration prediction of VOCs with high accuracy based on an electronic nose using an ELM-ELM integrated algorithm[J]. IEEE Sensors Journal, 2022, 22(14):14458-14469.
[27] Lee S K, Lee J H, Kim H R, et al. Rapid and concise quantification of mycelial growth by microscopic image intensity model and application to mass cultivation of fungi[J]. Scientific Reports, 2021, 11:24157.
[28] Song Z L, Li Y B, Zhao H Y, et al. Application of computer vision techniques to fermented foods: An overview[J]. Trends in Food Science &Technology, 2025, 160:104982.
[29] 孙梦梅, 王瑞生, 张振凌, 等. 基于指纹图谱及化学计量学研究不同发酵程度建曲中成分变化[J]. 中草药, 2022, 53(14):4340-4349.Sun M M, Wang R S, Zhang Z L, et al. Study on changes of components in Jianqu with different degrees of fermentation based on fingerprint and chemometrics[J]. Chinese Traditional and Herbal Drugs, 2022, 53(14):4340-4349.
[30] Racioppo A, Campaniello D, Sinigaglia M, et al. Use of food spoilage and safety predictor for an “a priori” modeling of the growth of lactic acid bacteria in fermented smoked fish products[J]. Foods, 2022, 11(7):946.
[31] Tan C Q, Xie D S, Liu Y J, et al. Identification of different bile species and fermentation times of bile Arisaema based on an intelligent electronic nose and least squares support vector machine[J]. Analytical Chemistry, 2018, 90(5)3460-3466.
[32] Urtubia A, León R, Vargas M. Identification of chemical markers to detect abnormal wine fermentation using support vector machines[J]. Computers &Chemical Engineering, 2021, 145:107158.
[33] Du T H, Xu Y Z, Xu X Y, et al. ACE inhibitory peptides from enzymatic hydrolysate of fermented black sesame seed: Random forest-based optimization, screening, and molecular docking analysis[J]. Food Chemistry, 2024, 437:137921.
[34] 赵琛, 瞿海斌, 程翼宇. 虫草氨基酸的人工神经网络近红外光谱快速测定方法[J]. 光谱学与光谱分析, 2004, 24(1):50-53.Zhao C, Qu H B, Cheng Y Y. A new approach to the fast measurement of content of amino acids in Cordyceps sinensis by ANN-NIR[J]. Spectroscopy and Spectral Analysis, 2004, 24(1):50-53.
[35] Hua L, Zhang C, Sun W, et al. An evolutionary deep learning soft sensor model based on random forest feature selection technique for penicillin fermentation process[J]. ISA Transactions, 2023, 136:139-151.
[36] Zhou J C, Gan L, Yang H, et al. Research on a prediction model of key parameters in Baijiu fermentation based on an attention mechanism[J]. Acta Scientiarum Polonorum Technologia Alimentaria, 2025:409-425.
[37] Sodiwal K A, Chai W Y, Tan M K, et al. Adaptive exponential feeding control for a fedbatch yeast fermentation process using reinforcement learning[C]. 2024 IEEE International Conference on Artificial Intelligence in Engineering and Technology (IICAIET). IEEE, 2024:665-670.
[38] Rajasekhar N, Radhakrishnan T K, Mohamed S N. Reinforcement learning based temperature control of a fermentation bioreactor for ethanol production[J]. Biotechnology and Bioengineering, 2024, 121(10):3114-3127.
[39] Panjapornpon C, Chinchalongporn P, Bardeeniz S, et al. Reinforcement learning control with deep deterministic policy gradient algorithm for multivariable pH process[J]. Processes, 2022, 10(12):2514.
[40] Li D Z, Zhu F Q, Wang X, et al. Multi-objective reinforcement learning for fed-batch fermentation process control[J]. Journal of Process Control, 2022, 115:89-99.
[41] Davidopoulou C, Ouranidis A. Pharma 4.0-artificially intelligent digital twins for solidified nanosuspensions[J]. Pharmaceutics, 2022, 14(10):2113.
[42] Sokolov M, Von Stosch M, Narayanan H, et al. Hybrid modeling: A key enabler towards realizing digital twins in biopharma?[J]. Current Opinion in Chemical Engineering, 2021, 34:100715.
[43] Liu G P, Wu M Y, Li Y F, et al. The effect of different pretreatment methods on jujube juice and lactic acid bacteria-fermented jujube juice[J]. LWT, 2023, 181:114692.
[44] Zhao Y L, Qian Z L, Li X Y, et al. Rapid authentication of Dendrobium species using attenuated total reflectance Fourier transform infrared (ATR-FTIR) and Fourier transform near-infrared (FT-NIR) spectroscopies with orthogonal partial least squares-discriminant analysis (OPLS-DA)[J]. Analytical Letters, 2025, 58(18):3155-3175.
[45] Zhang C, Wu W Y, Zhou L, et al. Developing deep learning based regression approaches for determination of chemical compositions in dry black goji berries (Lycium ruthenicum Murr.) using near-infrared hyperspectral imaging[J]. Food Chemistry, 2020, 319:126536.
[46] Liu X Q, Feng X, Liu Y, et al. Removing the horse urine-like off-odor of gastrodia elata blume by solid-state fermentation with Schizophyllum commune[J]. Food Bioscience, 2025, 73:107705.
[47] Song W S, Kim M J, Shin K C, et al. Increased production of ginsenoside compound K by optimizing the feeding of American ginseng extract during fermentation by Aspergillus tubingensis[J]. Journal of Microbiology and Biotechnology, 2022, 32(7):902-910.
[48] Lin Z Y, Lin Z J, Chen S D. Rice bran and American ginseng residue as media for black truffle solid-state fermentation[J]. Sustainability, 2025, 17(12):5562.
[49] Wang Y, Lin L, Li L L, et al. Dynamic changes of differential metabolites and key metabolic pathways of Gastrodia elata Blume during fermentation[J]. International Journal of Food Properties, 2022, 25(1):1539-1548.
[50] Cho K M, Lee H Y, Lee Y M, et al. Comparative assessment of compositional constituents and antioxidant effects in ginseng sprouts (Panax ginseng) through aging and fermentation processes[J]. LWT, 2022, 164:113644.
[51] Yang J J, Zhang X, Dai J F, et al. Effect of fermentation modification on the physicochemical characteristics and anti-aging related activities of Polygonatum kingianum polysaccharides[J]. International Journal of Biological Macromolecules, 2023, 235:123661.
[52] Chen H, Shi X Q, Cen L Y, et al. Effect of yeast fermentation on the physicochemical properties and bioactivities of polysaccharides of Dendrobium officinale[J]. Foods, 2022, 12(1):150.
[53] Zhang Y T, You S Q, Wang D D, et al. Fermented Dendrobium officinale polysaccharides protect UVA-induced photoaging of human skin fibroblasts[J]. Food Science &Nutrition, 2022, 10(4):1275-1288.
[54] Ferreira M U. Natural products in drug discovery and human health[J]. Phytochemistry Reviews, 2021, 20(1):1-4.
[55] Squadrito F, Bitto A, Irrera N, et al. Pharmacological activity and clinical use of PDRN[J]. Frontiers in Pharmacology, 2017, 8:224.
[56] Aly S H, Elissawy A M, Eldahshan O A, et al. The pharmacology of the genus Sophora (Fabaceae): An updated review[J]. Phytomedicine, 2019, 64:153070.