随着微生物组学研究的不断深入,益生菌衍生制剂的开发已从传统活菌制剂拓展至非活菌组分领域。后生元被定义为对宿主健康有益的无生命微生物及其成分制剂[1],主要包括菌体成分,如脂壁酸、磷壁酸、肽聚糖、细胞表面蛋白、多糖、细胞膜蛋白、细胞外多糖等;微生物代谢产物,如维生素、脂质、酵素、蛋白质、多肽、有机酸、短链脂肪酸、胞内多糖等。与益生菌相比,后生元弥补了活菌制剂在存活率、稳定性、潜在致病风险以及加工耐受性等方面的局限,在加工、贮存、运输及实际应用中表现出更优的适应性。目前,后生元研究正处于从机制探索向产业化转型的关键阶段。
本文系统总结了后生元的潜在作用机制,重点关注其制备工艺的研究进展,全面评述其在多个领域中的开发应用现状,并展望该领域未来面临的挑战与发展方向,以促进后生元产业的科学化和规范化发展,为后生元的科学转化与应用提供理论依据和实践指导。
1 后生元潜在作用机制
近年来,后生元对宿主健康的促进作用机制研究不断深入,从早期观察单一健康效应到系统性地揭示其通过肠道微生态、免疫信号、代谢通路与神经内分泌系统等多途径构成的协同、有序甚至具有正反馈调节功能的复杂网络,为后生元在食品、医药等领域的精准应用奠定了坚实的科学基础。该网络的核心在于后生元中的多种活性成分能够作为关键信号分子,同时或序贯地与宿主的不同细胞及分子靶点相互作用。后生元在肠道中通过调控菌群结构与屏障功能影响局部免疫与代谢,活性成分可被吸收或通过迷走神经等途径进行肠-脑轴通信,实现系统性调节。该多层次、整体性的作用网络,对揭示后生元的健康效应和开发精准干预策略至关重要。
1.1 肠道菌群调控
肠道菌群在维持宿主健康中发挥关键作用,肥胖、肠易激综合征等多种疾病的发生发展与肠道菌群失调密切相关。后生元可通过多种机制调节肠道菌群平衡。后生元中的有机酸可降低肠道内pH值,形成不利于有害菌生长的酸性环境,从而抑制大肠杆菌、沙门氏菌及李斯特菌等致病菌的定植与生长[2]。后生元中的特定胞外多糖和酶类可为双歧杆菌、乳杆菌等有益菌提供生长所需营养,增强其在肠道微生态中的竞争能力,进一步优化肠道菌群结构[3]。研究显示植物乳植杆菌IOB602后生元能够显著提高小鼠肠道中双歧杆菌与乳酸杆菌的数量,同时抑制肠杆菌科细菌增殖,从而改善肠道微生态平衡[4]。此外,后生元中的短链脂肪酸和胞外多糖等成分还可上调肠道上皮细胞紧密连接蛋白的表达,降低肠道通透性,预防“肠漏”的发生,进而有效阻止内毒素及病原体入侵[5]。
1.2 抗氧化与抗凋亡作用
氧化应激是许多慢性疾病的根源,当体内的自由基超过抗氧化防御系统的清除能力时,就会发生氧化应激,导致细胞损伤、蛋白质和DNA突变等氧化损伤。紫外线辐射是皮肤氧化应激的主要来源,会导致皮肤胶原蛋白降解、出现皱纹和色斑,加速衰老。细胞凋亡是程序性细胞死亡,是身体的正常生理过程,但过度或不适当的细胞凋亡会导致组织损伤和疾病。
对于氧化应激与细胞凋亡对机体的负面影响,后生元展示出显著的抗氧化和抗凋亡活性。其抗氧化能力主要源于多酚、多糖、维生素、酶类以及具有抗氧化活性的肽类物质。这些成分能够直接清除体内过量的自由基,减轻其对DNA、蛋白质和脂质等生物大分子的氧化损伤,从而缓解细胞氧化应激。研究显示,乳酸菌发酵产生的胞外多糖、酶类等具有较强的DPPH自由基清除能力和铁离子还原能力[6-7]。如鼠李糖乳酪杆菌和罗伊氏粘液乳杆菌后生元可显著抑制脂质过氧化水平,并提高细胞内抗氧化酶活性[8]。此外,后生元还能通过上调抗氧化酶相关基因的表达,激活内源性抗氧化防御系统。
在抗凋亡方面,后生元可调节细胞内的凋亡信号通路,如抑制线粒体途径的细胞色素C释放,降低半胱天冬酶家族蛋白酶的活性,从而阻止细胞凋亡的执行。同时也可通过激活PI3K/Akt等生存信号通路,促进细胞存活和增殖[9]。后生元的抗氧化和抗凋亡活性存在协同效应,氧化应激本身是诱导细胞凋亡的重要信号。因此,后生元通过抗氧化作用减少凋亡触发因素的同时,又直接作用于凋亡通路,从而形成双重防护机制。这两大核心生物学活性,为维持人体细胞健康、抵御慢性疾病和延缓组织器官退化提供重要理论依据和应用潜力,特别是在维护肠道这一“健康基石”的功能上发挥着关键作用。
1.3 免疫调节作用
后生元的免疫调节作用核心在于其能够作为重要的信号分子,与巨噬细胞、树突状细胞等免疫细胞及肠道上皮细胞上的模式识别受体相互作用,以精确调控免疫应答,促进免疫稳态[10-11]。其细胞壁组分可作为免疫佐剂直接激活免疫细胞,增强吞噬功能与杀菌能力。例如,从传统发酵食品中分离的乳酸菌后生元能够刺激巨噬细胞产生NO并上调表面标志物表达,从而强化先天免疫防御[12]。后生元还能影响淋巴细胞分化,如促进调节性T细胞的增殖以抑制过度免疫反应、维持自身免疫耐受,并调节Th1/Th2/Th17免疫反应的平衡,这对于过敏性疾病和自身免疫疾病的干预具有重要意义[13-14],如图1所示。此外,嗜黏蛋白阿克曼菌(Akkermansia muciniphila)代谢产物骆驼蓬碱可通过胆汁酸-TGR5-NF-κB通路调控免疫细胞活性,抑制病毒感染引发的系统性炎症反应,进一步拓展了后生元在感染性疾病免疫干预中的应用潜力[15]。
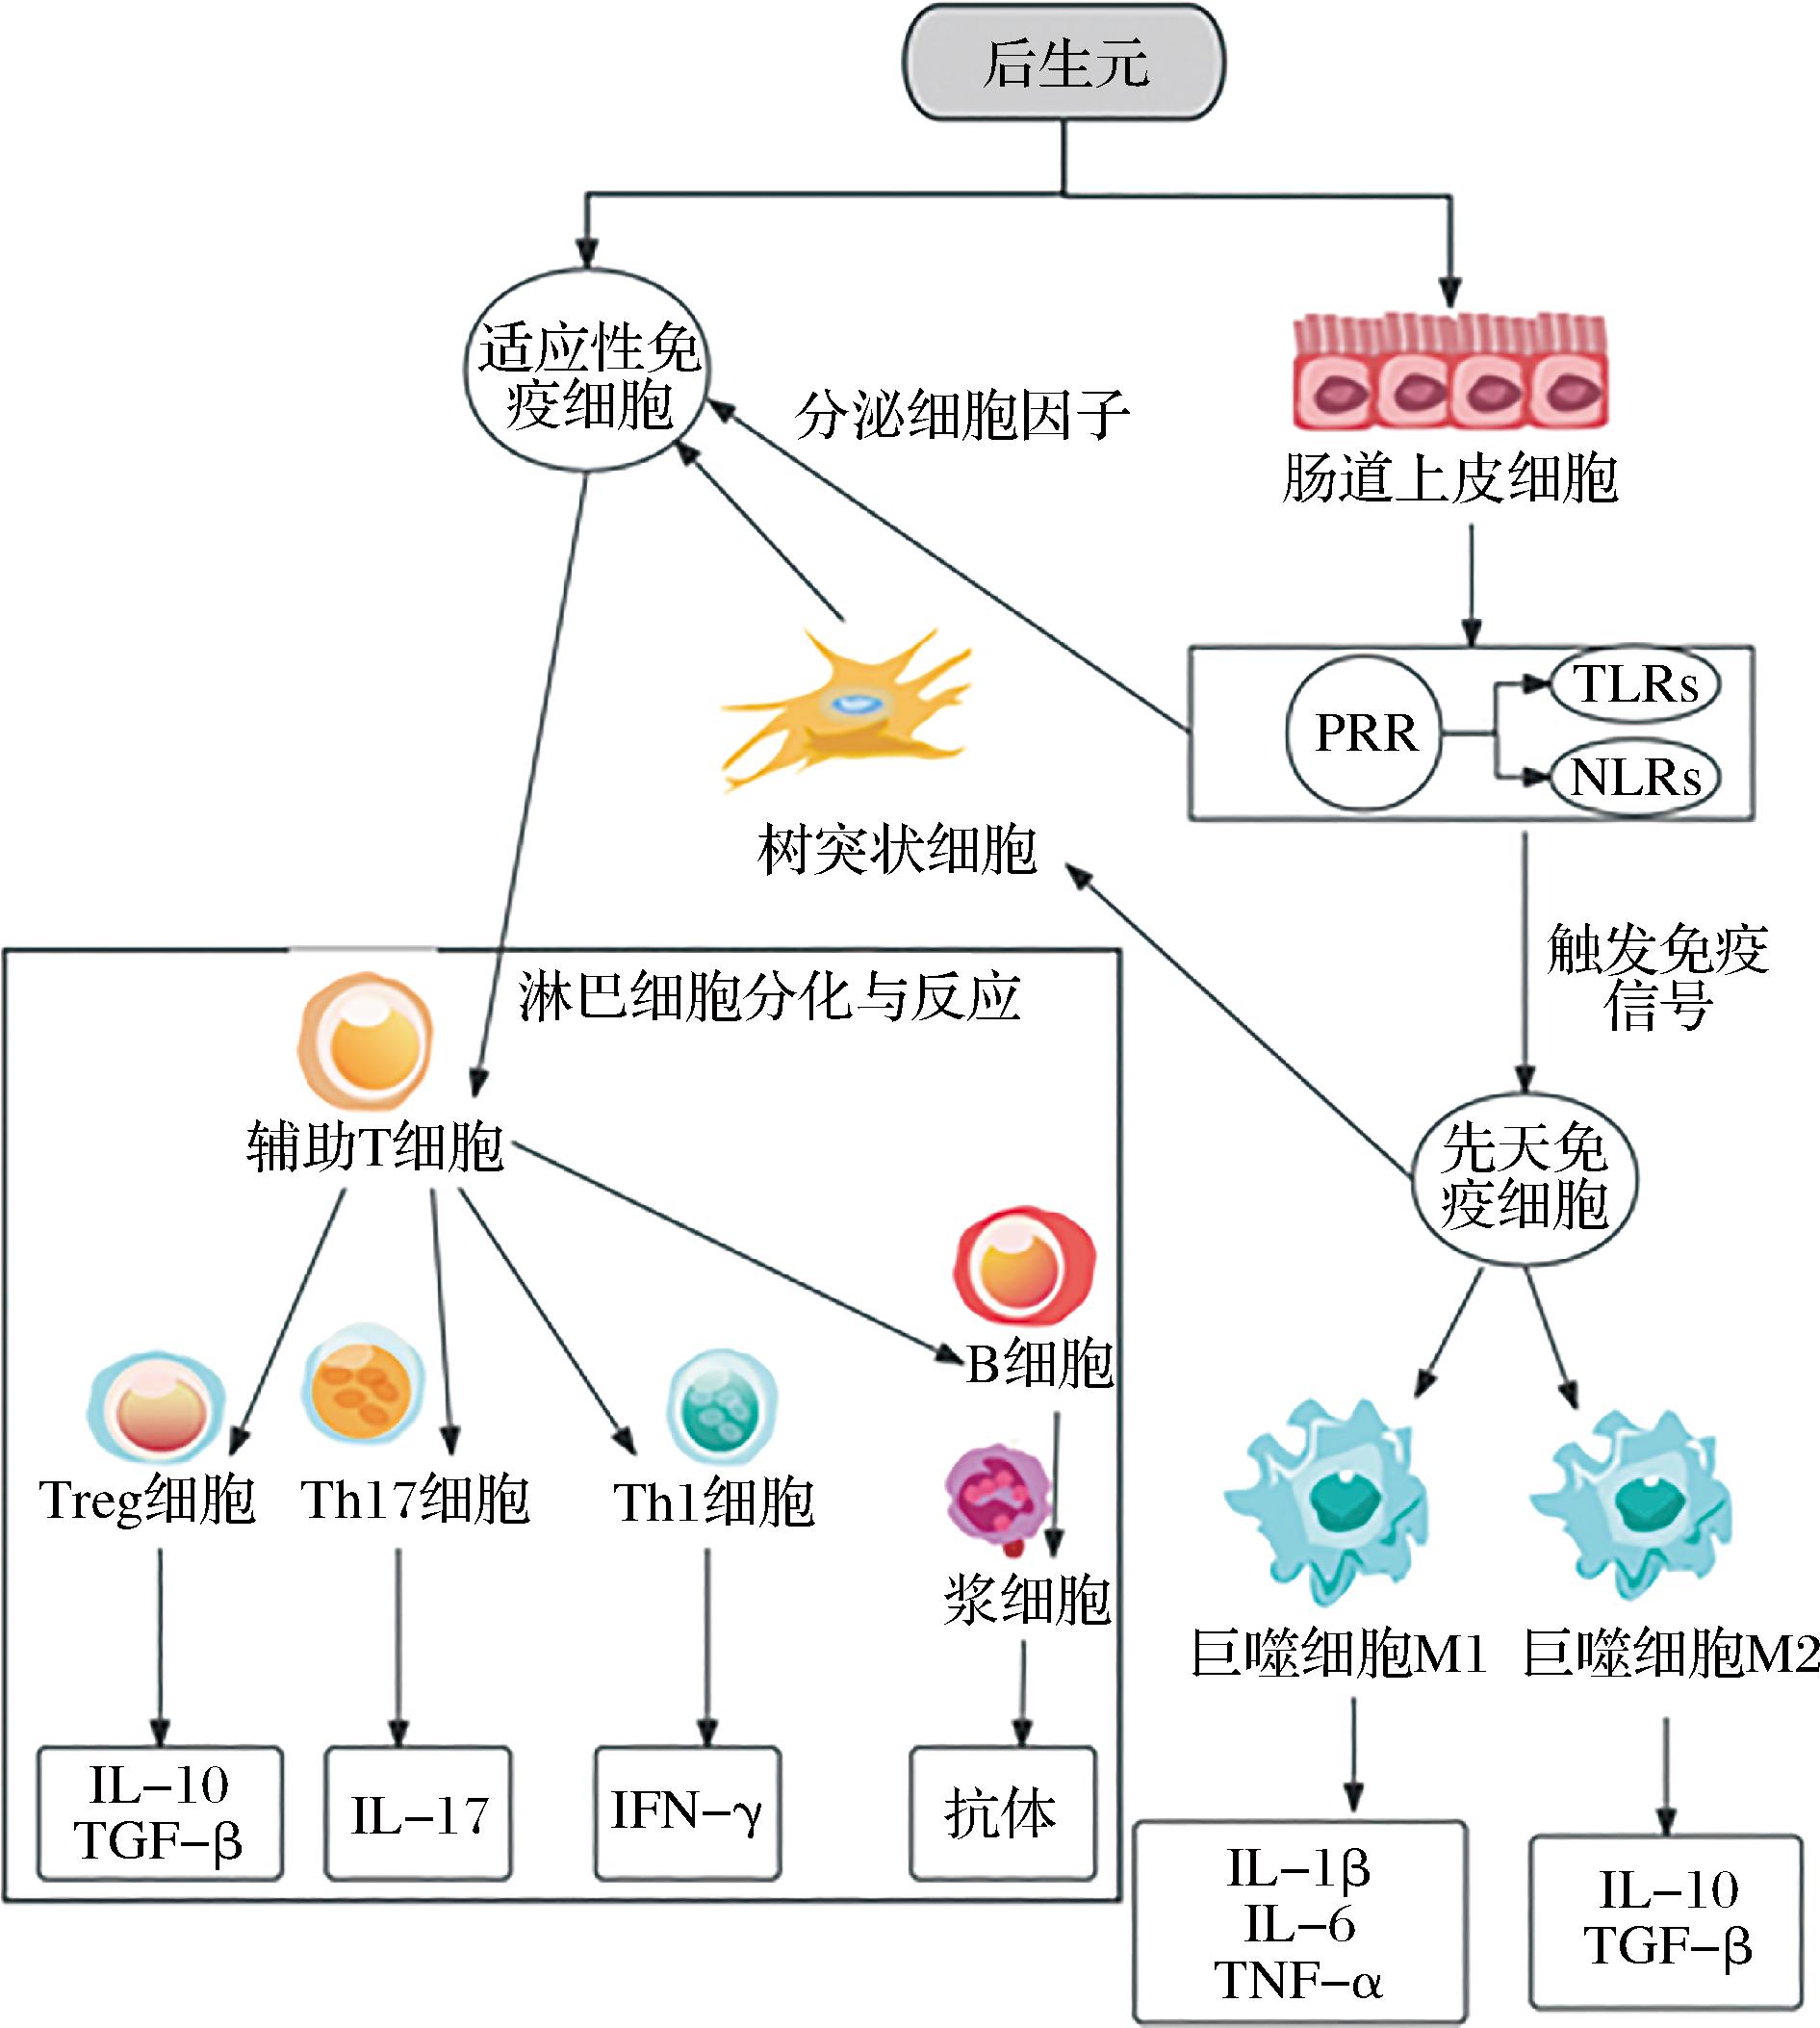
图1 后生元参与免疫调节主要途径
Fig.1 Main pathways through which postbiotics participate in immune regulation
注:PRR-模式识别受体;TLRs-Toll样受体;NLRs-NOD样受体。
1.4 代谢调控
后生元在能量代谢和营养物质代谢中发挥重要作用。其中短链脂肪酸如乙酸、丙酸和丁酸是核心效应物质,可通过激活G蛋白偶联受体和抑制组蛋白去乙酰化酶,参与调节葡萄糖稳态和脂质代谢[16]。也可通过模拟胰岛素敏感激素、促进胰高血糖素样肽-1(gluragon-like peptide-1,GLP-1)分泌以及改善肠道菌群结构,增强外周组织对葡萄糖的摄取和利用[17]。研究证实A.muciniphila分泌的P9蛋白可直接刺激GLP-1受体信号通路,调节胰岛素分泌以维持血糖平衡;同时可以减少体重和脂肪量增加,改善葡萄糖稳态,缓解代谢紊乱[18-19]。另外,胞外多糖可通过TLR2-AMPK通路抑制脂肪细胞分化,减少脂质积累,促进能量代谢[20]。
后生元还可影响胆汁酸代谢,通过胆盐水解酶活性和胆固醇7α-羟化酶调节胆汁酸含量,进而激活法尼醇X受体,改善酒精诱导的小鼠肝脏损伤和脂质代谢[21],对代谢相关脂肪肝病具有干预潜力。研究发现,乳酸菌来源的后生元能够降低脂肪酸合成酶的活性和固醇调节元件结合蛋白-1c的表达,减缓肝脏脂肪积累,并改善肝脏氧化应激,从而减轻高脂饮食诱导非酒精性脂肪肝[22]。动物实验表明,灌胃植物乳植杆菌后生元提取物可显著降低肥胖小鼠的体重、血脂水平和脂肪细胞大小,其机制与AMPK通路激活有关[23]。同时,A.muciniphila后生元可精准改善肝细胞损伤,降低谷丙转氨酶水平,对非酒精性脂肪肝病的干预效果已得到基础与临床研究的双重支持[24]
1.5 神经内分泌调控
后生元可通过肠-脑轴介导的神经、内分泌及免疫途径调节中枢神经系统功能,影响情绪、神经发育及应激响应。后生元中的短链脂肪酸成分可促使肠嗜铬细胞释放5-羟色胺,从而影响中枢神经系统[25]。后生元亦可通过激活肠道黏膜中的免疫细胞分泌抗炎因子,抑制促炎因子的释放,抑制小胶质细胞的过度激活,从而减轻神经炎症[26];此外,后生元还可通过影响下丘脑-垂体-肾上腺轴的活性,调节应激激素水平。例如,双歧杆菌或乳酸菌来源的肽聚糖与短链脂肪酸可通过抑制下丘脑-垂体-肾上腺轴的过度激活,降低血清皮质醇水平[27-28]。植物乳植杆菌IOB602后生元可下调小鼠血清促肾上腺皮质激素释放激素的表达,减少垂体分泌促肾上腺皮质激素,从而降低皮质酮水平,改善抑郁样行为[4]。后生元还可通过提升黑质中多巴胺水平、降低α-突触核蛋白含量、保护多巴胺能神经元免于流失、减少神经原纤维缠结聚集、抑制淀粉样蛋白β肽斑块沉积以及改善运动功能障碍等多种途径发挥神经保护作用[29]。然而,后生元成分复杂,其“多靶点”协同作用机制仍有待进一步研究。
2 后生元工艺研究进展
后生元通过免疫调节、代谢调控等多重途径发挥健康效应。而要将这些效应转化为上市产品,核心在于先进的工艺技术。后生元从基础研究迈向产业化应用,高度依赖于一套集成化且精细控制的制备工艺体系。该体系始于高性能菌株(如源自人体肠道的乳杆菌、A.muciniphila等)的定向选育与改造,进而需要对发酵过程进行优化调控,以实现目标活性成分的高效合成。随后是关键的灭活工艺,需要在确保微生物生命活动终止的同时最大限度保留功能成分的生物活性。最终经提取、分离与制剂化技术,获得稳定性高、活性明确且适用于不同应用场景的终端产品。在整个制备工艺流程中,每一工艺环节的设计与参数控制对终产物的得率、组成以及功能效果都具有不同程度的影响。近年来,多学科交叉技术的综合应用,正积极推动后生元制备工艺向精细化、标准化与规模化的方向不断发展。
2.1 菌种选育与发酵工艺研究
菌种是影响后生元产量和质量的关键因素,优良的菌种能够产生更多具有生物活性的后生元,因此菌种选育是后生元工艺研究的重要环节。菌种选育主要采用自然筛选、诱变育种和基因工程育种等方法。诱变育种通过物理或化学等方法诱导菌株发生基因突变,有助于筛选出高产、优质的突变株。基因工程育种则是通过重组DNA技术对菌株进行改造,定向获得具有特定功能的菌株,例如通过基因工程技术改造乳酸菌,可使其过量表达胞外多糖、抗菌肽等具有生物活性的代谢产物[30]。然而,诱变育种具有随机性和不可控性,基因工程育种虽能精准干预,但在复杂生命系统中难以完全预测其产生的次级效应,具有潜在的食用风险。
自然筛选是从长期与人类共生的环境(如健康人体肠道或传统食物)中分离的具有优良特性的菌株,这些菌株已经在自然状态下与人类共存了数千年,其安全性经过了自然的“长期实验”验证,通常不携带抗生素,抗性基因、毒力因子和/或致病因子等潜在风险因子,如分离自广西百岁老人肠道的广西阿克曼氏菌N21116和N21169[31],以及罗伊氏粘液乳杆菌A21041[32]。自然筛选的菌株,尤其是源自人体肠道的菌株(如双歧杆菌等),在进化上已经“预适应”了人体肠道环境,一方面,它们天生具有更好的能力来耐受胃酸的强酸性和小肠的胆汁盐,这是益生菌能够到达肠道并发挥作用的前提;其次,这些菌株具备更强的黏附与定植能力,这是其发挥益生功能(如竞争性排斥病原体、强化肠道屏障)的重要基础;另外,源自人体肠道的菌株,更可能与本已存在的人类肠道微生物群和谐共存,从而减少对肠道微生态平衡的扰动。制备后生元制剂的菌株来源如表1所示[33]。
表1 后生元菌株来源
Table 1 Source of postbiotic strains
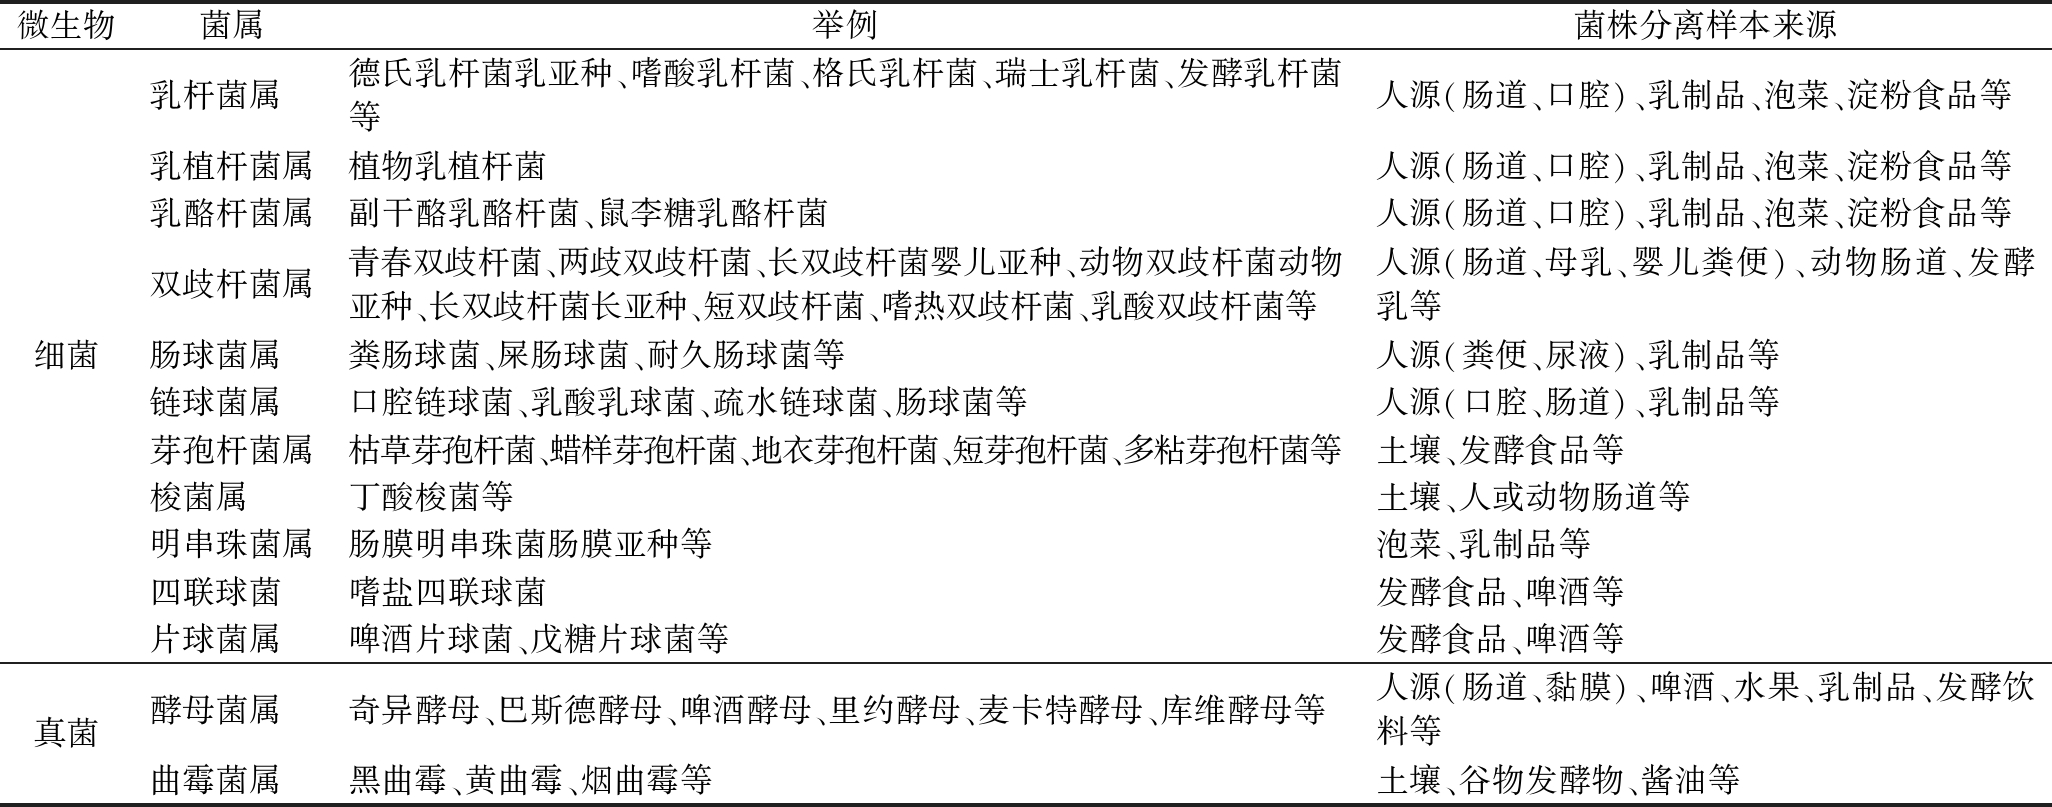
微生物菌属举例菌株分离样本来源细菌乳杆菌属德氏乳杆菌乳亚种、嗜酸乳杆菌、格氏乳杆菌、瑞士乳杆菌、发酵乳杆菌等人源(肠道、口腔)、乳制品、泡菜、淀粉食品等乳植杆菌属植物乳植杆菌人源(肠道、口腔)、乳制品、泡菜、淀粉食品等乳酪杆菌属副干酪乳酪杆菌、鼠李糖乳酪杆菌人源(肠道、口腔)、乳制品、泡菜、淀粉食品等双歧杆菌属青春双歧杆菌、两歧双歧杆菌、长双歧杆菌婴儿亚种、动物双歧杆菌动物亚种、长双歧杆菌长亚种、短双歧杆菌、嗜热双歧杆菌、乳酸双歧杆菌等人源(肠道、母乳、婴儿粪便)、动物肠道、发酵乳等肠球菌属粪肠球菌、屎肠球菌、耐久肠球菌等人源(粪便、尿液)、乳制品等链球菌属口腔链球菌、乳酸乳球菌、疏水链球菌、肠球菌等人源(口腔、肠道)、乳制品等芽孢杆菌属枯草芽孢杆菌、蜡样芽孢杆菌、地衣芽孢杆菌、短芽孢杆菌、多粘芽孢杆菌等土壤、发酵食品等梭菌属丁酸梭菌等土壤、人或动物肠道等明串珠菌属肠膜明串珠菌肠膜亚种等泡菜、乳制品等四联球菌嗜盐四联球菌发酵食品、啤酒等片球菌属啤酒片球菌、戊糖片球菌等发酵食品、啤酒等真菌酵母菌属奇异酵母、巴斯德酵母、啤酒酵母、里约酵母、麦卡特酵母、库维酵母等人源(肠道、黏膜)、啤酒、水果、乳制品、发酵饮料等曲霉菌属黑曲霉、黄曲霉、烟曲霉等土壤、谷物发酵物、酱油等
发酵是后生元活性成分形成和积累的关键阶段,其核心是通过优化培养条件最大限度地提高目标产物得率。培养基中碳源、氮源、矿物质和生长因子的种类与浓度直接影响菌体密度和代谢谱[34]。通过对乳酸菌发酵的营养源优化研究发现,碳源种类与氮源比例可显著影响后生元中有机酸、胞外多糖等活性成分的含量。近年来,利用乳清、豆渣、麦麸等农业副产物作为低成本培养基已成为研究热点,在降低生产成本、实现资源循环利用的同时,还可促使特定菌株(如发酵食品与人体肠道的发酵黏液乳杆菌等)生产出具有特定功能活性的后生元[35]。
发酵工艺参数的精准调控对提升后生元品质至关重要,关键参数包括温度、pH值、接种量、发酵时间、溶氧量等。采用响应面法等统计优化手段,可系统评估多因子交互作用并确定最优工艺条件。Tong等[36]和Almahbashi等[37]通过单因素试验、响应面法等方法对发酵工艺参数进行优化,提高了植物乳植杆菌后生元的产量和活性。
在发酵培养方面,传统分批发酵虽操作简单,但存在底物利用率低的问题;补料分批发酵通过阶段性添加营养物质,可提高布氏乳杆菌等菌株的持续代谢能力,提高后生元产量;固态发酵则适用于以农产品副产物为原料的生产场景,在降低生产成本的同时提升原料利用率。近年来,生物反应器的应用实现了发酵过程的自动化调控,通过实时监测pH、溶氧等参数,可精准控制乳植杆菌等后生元的生产过程,为规模化生产奠定了基础[38]。
2.2 后生元灭活工艺研究
灭活是后生元制备的核心步骤,其目的是杀死微生物的同时最大限度地保留其生物活性成分。常用的灭活方法主要包括热处理、物理灭活及化学灭活等。其中热处理是最常用的灭活方法之一,具有操作简单、成本低等优点,但热处理可能导致酶类、多肽等热敏感成分失活,并可能引发美拉德反应,改变产品风味和色泽。研究表明,巴氏杀菌和高温短时处理通常比高温长时间灭菌更能保留活性[39]。
在物理灭活方法中,高压处理、超声波和辐照等技术展示出独特优势。高压处理是利用高静水压力使微生物失活,对蛋白质构象和小分子活性物质影响较小,能更好地保留功能性成分的天然活性[40]。辐照处理是利用γ射线或电子束等射线照射微生物,使其DNA受损而死亡,该方法具有灭活效果好、无残留等优点,能较好地保留代谢活性和部分免疫调节功能,然而成本和法规接受度是较大的限制因素[41]。化学灭活是采用甲醛、过氧化物等化学试剂对微生物进行灭活,虽操作简便,却存在化学残留风险,在食品与医药领域的应用受到限制。因此,灭活方法的选择需结合目标后生元的应用场景,例如用于食品保鲜的后生元更适合热处理或高压处理;而用于化妆品的后生元则需优先考虑温和物理灭活以保留活性多肽等成分。常用的后生元灭活工艺参数如表2所示。
表2 后生元灭活工艺参数
Table 2 Postbiotic inactivation process parameters
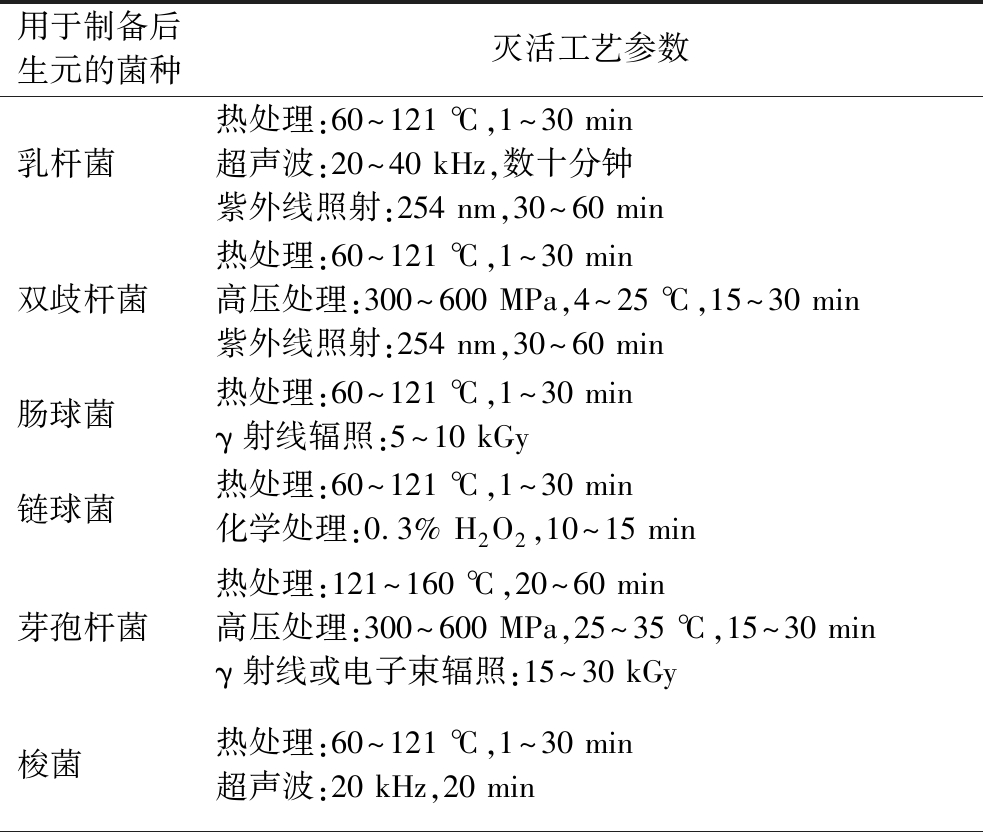
用于制备后生元的菌种灭活工艺参数乳杆菌热处理:60~121 ℃,1~30 min超声波:20~40 kHz,数十分钟紫外线照射:254 nm,30~60 min双歧杆菌热处理:60~121 ℃,1~30 min高压处理:300~600 MPa,4~25 ℃,15~30 min紫外线照射:254 nm,30~60 min肠球菌热处理:60~121 ℃,1~30 minγ射线辐照:5~10 kGy链球菌热处理:60~121 ℃,1~30 min化学处理:0.3% H2O2,10~15 min芽孢杆菌热处理:121~160 ℃,20~60 min高压处理:300~600 MPa,25~35 ℃,15~30 minγ射线或电子束辐照:15~30 kGy梭菌热处理:60~121 ℃,1~30 min超声波:20 kHz,20 min
续表2
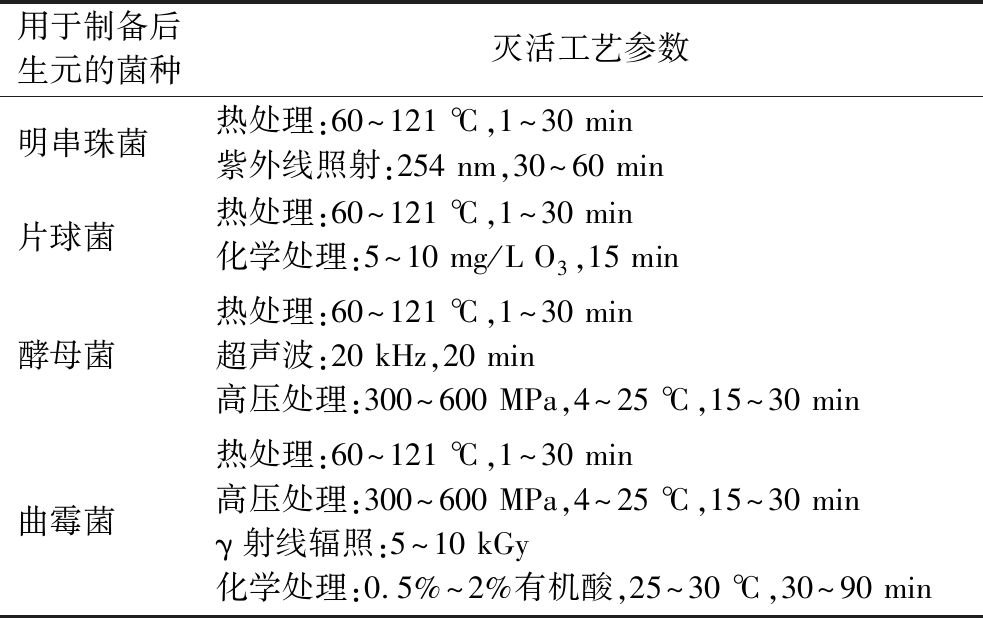
用于制备后生元的菌种灭活工艺参数明串珠菌热处理:60~121 ℃,1~30 min紫外线照射:254 nm,30~60 min片球菌热处理:60~121 ℃,1~30 min化学处理:5~10 mg/L O3,15 min酵母菌热处理:60~121 ℃,1~30 min超声波:20 kHz,20 min高压处理:300~600 MPa,4~25 ℃,15~30 min曲霉菌热处理:60~121 ℃,1~30 min高压处理:300~600 MPa,4~25 ℃,15~30 minγ射线辐照:5~10 kGy化学处理:0.5%~2%有机酸,25~30 ℃,30~90 min
2.3 后生元成分富集与分离技术
后生元成分的富集与分离技术是确保其功能活性、纯度和最终应用效果的核心环节。该过程旨在从复杂的微生物发酵体系中精准回收目标功能成分,如短链脂肪酸、细菌素、胞外多糖、肽类及细胞壁碎片等。
发酵液预处理是首要环节,发酵后的乳杆菌常通过离心或微滤去除菌体及大颗粒杂质,实现固液初步分离[42]。对于获取可溶性代谢产物的后生元,则需进一步处理上清液;若侧重于菌体组分(如灭活后的戊糖片球菌),则需对菌体进行破碎细胞破壁处理(超声波、高压均质或酶解等)以释放胞内物质[37]。
膜分离技术采用超滤和纳滤等方法,凭借其操作条件温和、易于放大且能按分子质量进行高效分级的特点被广泛应用。例如,在处理干酪乳酪杆菌发酵上清液时采用截留分子质量为10 kDa的超滤膜可有效分离小分子代谢物与蛋白质等大分子杂质[43];对于大分子物质,如乳酸菌胞外多糖,其分离纯化的关键在于去除蛋白质和其他杂质,常用乙醇沉淀结合透析或超滤[44]。
层析色谱技术可实现更高纯度的制备,离子交换色谱和凝胶过滤色谱被广泛用于纯化乳酸菌产生的细菌素、抗菌肽等带电生物分子。高效液相色谱和固相萃取技术则适用于后生元发酵液中的短链脂肪酸等小分子的纯化[45-46]。此外,硫酸铵沉淀、有机溶剂沉淀等传统方法仍在特定成分的浓缩中发挥价值,而双水相萃取等绿色新技术也为生物活性物质的高选择性分离提供了新途径。后生元富集或分离技术所得到的功效成分详见表3。
表3 后生元功能成分的富集与分离技术及其作用
Table 3 Enrichment and separation techniques of postbiotic functional components and their effects
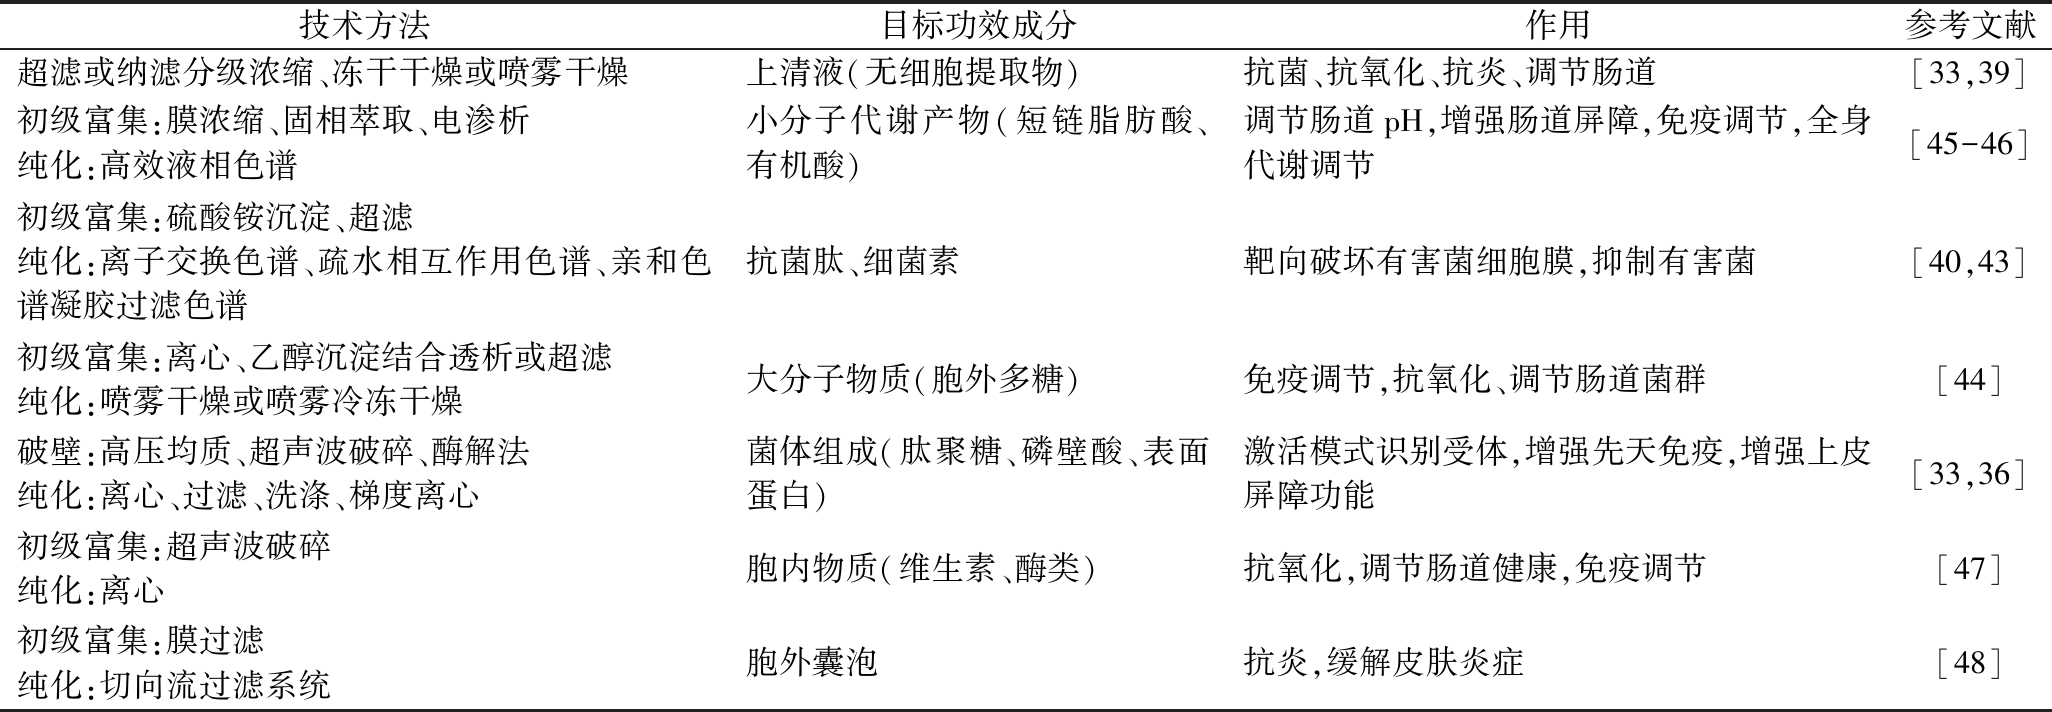
技术方法目标功效成分作用参考文献超滤或纳滤分级浓缩、冻干干燥或喷雾干燥上清液(无细胞提取物)抗菌、抗氧化、抗炎、调节肠道[33,39]初级富集:膜浓缩、固相萃取、电渗析纯化:高效液相色谱小分子代谢产物(短链脂肪酸、有机酸)调节肠道pH,增强肠道屏障,免疫调节,全身代谢调节[45-46]初级富集:硫酸铵沉淀、超滤纯化:离子交换色谱、疏水相互作用色谱、亲和色谱凝胶过滤色谱抗菌肽、细菌素靶向破坏有害菌细胞膜,抑制有害菌[40,43]初级富集:离心、乙醇沉淀结合透析或超滤纯化:喷雾干燥或喷雾冷冻干燥大分子物质(胞外多糖)免疫调节,抗氧化、调节肠道菌群[44]破壁:高压均质、超声波破碎、酶解法纯化:离心、过滤、洗涤、梯度离心菌体组成(肽聚糖、磷壁酸、表面蛋白)激活模式识别受体,增强先天免疫,增强上皮屏障功能[33,36]初级富集:超声波破碎纯化:离心胞内物质(维生素、酶类)抗氧化,调节肠道健康,免疫调节[47]初级富集:膜过滤纯化:切向流过滤系统胞外囊泡抗炎,缓解皮肤炎症[48]
3 后生元产品开发现状及质量控制与标准化进程
在后生元作用机制日益清晰和制备工艺渐趋成熟的共同推动下,后生元商业化产品开发呈现出多元化与精准化并存的发展态势,并迅速实现从概念验证向市场应用的转化。不同领域后生元应用产品及特性见表4。目前,后生元已渗透至大健康多个细分领域,主要涵盖功能性食品与膳食补充剂、疾病辅助治疗与干预、皮肤与个人健康管理和天然生物防腐剂四大应用方向:在功能性食品与膳食补充剂领域,后生元依托其显著的加工稳定性与生理功能明确性,正逐步成为替代传统益生菌的新型功能组分;在疾病辅助治疗与干预领域,后生元基于不断积累的临床验证,向代谢性疾病、免疫紊乱及神经精神类疾病的精准辅助治疗与预防拓展;在皮肤与个人健康管理领域,后生元凭借其调节皮肤微生态、强化屏障修复及天然来源的特性,已成为功效护肤领域备受关注的新型活性成分;此外,后生元作为天然生物防腐剂应用于食品工业,也开辟了重要的非营养型产业化路径。当前后生元相关产品开发呈现“普适性功能产品广泛推广”与“专业化高端产品引领创新”的双轨并行格局。
表4 不同领域的后生元产品及特性
Table 4 Postbiotic products and characteristics in different fields
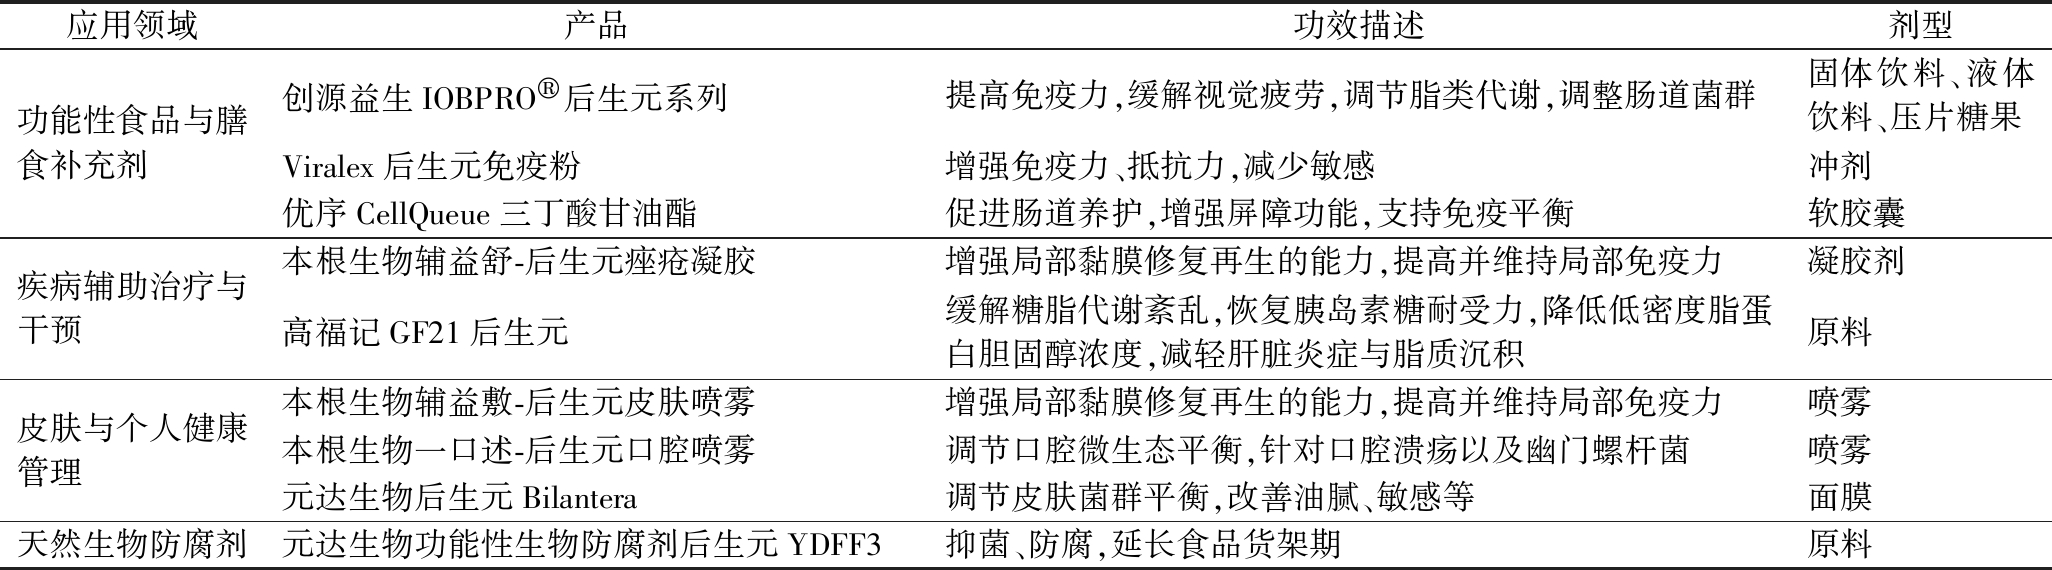
应用领域产品功效描述剂型功能性食品与膳食补充剂创源益生IOBPRO®后生元系列提高免疫力,缓解视觉疲劳,调节脂类代谢,调整肠道菌群固体饮料、液体饮料、压片糖果Viralex后生元免疫粉增强免疫力、抵抗力,减少敏感冲剂优序CellQueue三丁酸甘油酯促进肠道养护,增强屏障功能,支持免疫平衡软胶囊疾病辅助治疗与干预本根生物辅益舒-后生元痤疮凝胶增强局部黏膜修复再生的能力,提高并维持局部免疫力凝胶剂高福记GF21后生元缓解糖脂代谢紊乱,恢复胰岛素糖耐受力,降低低密度脂蛋白胆固醇浓度,减轻肝脏炎症与脂质沉积原料皮肤与个人健康管理本根生物辅益敷-后生元皮肤喷雾增强局部黏膜修复再生的能力,提高并维持局部免疫力喷雾本根生物一口述-后生元口腔喷雾调节口腔微生态平衡,针对口腔溃疡以及幽门螺杆菌喷雾元达生物后生元Bilantera调节皮肤菌群平衡,改善油腻、敏感等面膜天然生物防腐剂元达生物功能性生物防腐剂后生元YDFF3抑菌、防腐,延长食品货架期原料
3.1 后生元产品开发现状
3.1.1 功能性食品与膳食补充剂
后生元以其优越的稳定性和安全性,成为可与传统益生菌相媲美的理想功能成分,被创新性地融入多元化的产品中,包括乳制品、饮料、烘焙食品、糖果等膳食补充剂,赋予了产品特定的健康促进功能。在乳制品领域,添加乳酸菌灭活菌体或发酵上清液提取物可显著增强产品的益生功能。该类后生元不仅能耐受产品加工过程中的热处理,弥补传统益生菌存活率下降的问题,还能通过肽聚糖、磷壁酸等细胞壁成分以及代谢产生的短链脂肪酸和细菌素,持续作用于宿主肠道[49],促进有益菌增殖、抑制病原菌定植,强化肠道上皮细胞间的紧密连接,从而改善肠道屏障功能,缓解腹泻或便秘症状。后生元在婴幼儿及免疫力低下人群的营养配方食品中已得到广泛认可,同时在骨骼健康促进领域的潜力也逐步凸显。碧生源推出的含发酵粘液乳杆菌IOB802后生元[50]特膳粉能显著促进小鼠骨骼发育——可使股骨长度提升≥6.96%、骨重增加≥6.77%、骨密度提高≥10.04%,其作用机制与上调血清胰岛素生长因子和骨钙素水平密切相关。该研究为开发针对生长发育阶段、骨质疏松高发人群等目标群体的骨骼健康导向型后生元功能性食品,提供了直接的实验支撑与理论依据。
在膳食补充剂开发中,后生元展现出调节血糖、血脂以及能量代谢等方面的潜力。例如,特定乳酸菌的后生元成分能够模拟生物活性肽的功能,激活与饱腹感、胰岛素敏感性相关的肠道激素的分泌,从而辅助控制食欲和血糖水平。目前,市面上已出现众多降血糖、调血脂功效的后生元胶囊或粉剂产品。美国PDNAXI AKK复合高级益生菌胶囊,核心成分为巴氏灭活的A.muciniphila。另有研究表明,巴氏灭活的A.muciniphila能通过肠-脑轴调控血糖,还能促进下丘脑释放NO,同时抑制十二指肠收缩减缓肠道运动,减少营养吸收,以此发挥抗糖尿病作用[51]。
3.1.2 疾病辅助治疗与干预
后生元在疾病辅助治疗与干预,以机制研究和临床验证为开发目标。在非酒精性脂肪肝、2型糖尿病、肥胖等代谢性疾病方面,后生元通过多重机制发挥作用:一方面,后生元通过抑制肠道炎症,减少内毒素入血,缓解肝脏脂质堆积;另一方面,可通过调节糖脂代谢通路,改善胰岛素信号传导,减少脂肪细胞分化[52]。Difass International推出含后生元丁酸钙的Dibuzin,其作为特殊医学用途配方食品,可减少非酒精性脂肪肝患者肝脏脂肪含量[53]。
对于炎症性肠病(如溃疡性结肠炎),后生元可修复肠道黏膜、减轻炎症症状,其作用机制可能与调节肠道菌群结构及代谢功能、间接影响宿主免疫状态有关[54]。细菌素类后生元能抑制李斯特菌、沙门氏菌等致病菌,在抗生素耐药菌感染治疗中,后生元可辅助减少耐药菌定植[55],在治疗耐药菌感染(如耐甲氧西林金黄色葡萄球菌、耐药肠球菌)等抗菌药物替代品或辅助剂中具有广阔的市场前景。依托肠-脑轴机制,后生元也成为神经精神疾病的潜在干预剂。短链脂肪酸类后生元可调节神经递质,抑制中枢神经兴奋,缓解焦虑,并通过改善肠道菌群代谢,减轻神经炎症,间接发挥保护作用[56]。临床前研究证实,后生元能减少阿尔茨海默病模型小鼠脑内β-淀粉样蛋白沉积[57]未来可作为调节该类神经退行性疾病产品的重要功能性原料。
3.1.3 皮肤与个人健康管理
后生元在皮肤与个人健康管理领域,强调天然安全与精准修护,技术重点集中于皮肤屏障修复与微生态调节。
针对痤疮,后生元通过抑制痤疮丙酸杆菌活性和调节皮肤菌群平衡发挥双重作。研究显示,含植物乳植杆菌VHProbi® V22发酵裂解物的抗痤疮护肤霜,在轻中度寻常痤疮患者中应用4周后,70%的受试者痤疮病灶比例显著下降,皮肤刺激性低,表现出良好的安全性与耐受性[58]。Lacto PackD29修复乳膏含0.4%发酵乳杆菌灭活菌体,能辅助抑制痤疮丙酸杆菌,缓解痤疮引起的泛红不适。在痤疮和特应性皮炎等敏感肌问题中,后生元可修复皮肤屏障,增强皮肤角质层完整,抗炎舒缓[59];促进胶原合成,强韧屏障锁水[60]。另外,以燕麦为基质,通过乳酸发酵制备的后生元具有抗氧化、抗酪氨酸酶、紫外线防护等功能,乳酸发酵产物常被用于化妆品中,以改善皮肤纹理与保湿效果[61],含双歧杆菌发酵裂解物(特别是长双歧杆菌裂解物)的护肤产品,能改善皮肤屏障功能、减少皮肤敏感性[62-63]。
后生元凭借抗氧化特性,可延缓皮肤老化,清除自由基,减少脂质过氧化,保护皮肤细胞;抑制基质金属蛋白酶活性,减少胶原蛋白降解。此外,后生元中含有机酸、细菌素、H2O2等抗菌化合物,该类后生元漱口液等产品可调节口腔微生态,预防龋齿[64],进一步扩展了其在健康管理中的应用范围。
3.1.4 其他
后生元作为天然防腐剂应用于食品工业,可抑制食品中的致病菌与腐败菌生长,延长食品保质期[65]。与化学防腐剂相比,后生元具有安全性高、无残留等优点,符合消费者对天然、健康食品的需求。后生元应用形式主要包括表面喷涂和直接添加。在冷鲜肉和果蔬表面喷涂乳酸菌后生元提取物,可抑制致病菌生长,使鸡胸肉保质期延长9 d[66],草莓保质期延长7 d[67],在烘焙食品和乳制品中添加后生元,可抑制霉菌、酵母菌生长,避免面包霉变,例如,含乳酸菌后生元的奶酪可减少李斯特菌污染风险[68]。乳酸菌在面包产品中的应用已较为成熟,尤其在传统的酸面团面包制作中。乳酸菌通过发酵过程,在面团内产生多种有机酸、酶及其他代谢产物,在后续高温烘焙环节,这些乳酸菌会被灭活,但其残留的细胞结构组分与发酵代谢物(即后生元)会与面包的面筋网络及淀粉等基质结合。现有研究表明,这种由后生元参与形成的稳定复合结构,或可对面包的质构、风味保持以及保鲜期产生一定的正面影响,从而在提升产品品质与延长货架期方面展现出潜在的应用价值[69]。
在抗菌包装方面,后生元可作为功能性成分嵌入到包装材料中,主要分为3类:可食性膜,如酿酒酵母种子多糖黏液和后生元的复合涂层,用于肉制品保存,可提高货架期(>10 d)[70];生物降解膜,如后生元与聚乳酸复合,用于虹鳟鱼鱼片包装,既能维持品质又环保[71];智能包装,如含pH敏感[72]与后生元的包装,可通过颜色变化提示食品新鲜度,这类多功能、多响应的集成系统代表了智能食品包装的未来发展方向。另外,含乳酸菌后生元的壳聚糖膜可使鸡肉保质期延长6 d[73],相关技术已在欧洲食品企业初步应用。
3.2 后生元质量控制与标准化进程
后生元的质量控制与标准化是保障其安全、有效和产业健康发展的核心。与传统益生菌以“活菌数”为关键指标不同,后生元的质控核心更倾向于对特定无生命实体(包括菌体成分和代谢产物)的浓度与功能性活性的衡量,这一转变赋予其质控体系的特殊性与复杂性。后生元质量控制是一个贯穿全产业链的系统工程。在原料层面,需对原料菌株进行严格鉴定与安全性评估,确保菌种无误且不含毒力基因[74]。灭活工艺的验证与标准化尤为重要,必须在确保完全灭活的同时,最大限度保护目标功能成分的生物活性。最终产品的质量控制应涵盖安全性指标、理化指标以及特性指标——包括对灭活有效性的验证和基于体外细胞模型或生物测定法对免疫调节、抗菌等特定生物活性的定量分析。尽管后生元具有优于活菌的稳定性,但仍需进行系统的稳定性测试,确保其功能性在货架期内保持稳定。
目前,后生元的标准化仍处于初级阶段且呈现碎片化状态。国际益生菌和益生元科学协会发布的共识定义虽为全球标准化奠定了重要基础,但全球尚未形成统一监管框架,各国对其归类与审批要求存在较大差异。成分界定方面仍较模糊,不同研究对后生元活性成分的分类与含量阈值缺乏统一标准。例如,一些聚焦于免疫调节功能的研究倾向于将胞外多糖等大分子代谢产物的得率作为关键工艺指标,而另一些旨在开发生物防腐剂的研究,则以细菌素的效价为核心评价依据[75-76]。监管框架尚未完善,目前仅欧盟、美国等少数地区对后生元作为食品添加剂的使用范围做出规定,而多数国家仍将其归为“其他食品成分”,缺乏明确的审批流程与质量标准。上述问题也直接导致市场上后生元相关产品存在标签标识不规范问题,如部分后生元产品未标注活性成分含量、灭活方式及储存条件,易引起消费者产生误解。因此,将后生元的质量控制与标准化建设视为领域的当务之急,已成为广泛共识。
4 展望
综上所述,后生元作为一种前景广阔的新兴原料,其产业化发展路径已愈发清晰。随着作用机制研究的不断深入,科学理论正为产品的商业化应用铺平道路。在源头端,源自长寿健康人群的天然菌株,因其潜在的卓越功能特性,成为后生元菌种选育的核心方向,构筑起产品差异化的核心竞争力。在生产端,持续优化的工艺有效驱动了成本降低,为大规模产业化扫清了障碍。与此同时,后生元的应用领域正从功能性食品、医疗健康快速拓展至日化品等前沿领域,催生出一系列创新产品。
然而,要将这一广阔前景转化为稳健发展的产业,核心在于攻克质量控制和标准化这一关键瓶颈。当前,构建一个涵盖从菌株鉴定、工艺规范、功效成分验证到最终产品质控的全链条标准体系,已成为行业健康发展的根本前提。这一套体系是支撑科学研究可重复性及产品安全有效性的重要基础,也是获得市场和监管机构持续信任的关键因素。在此基础上,后生元领域有望在经历初期探索阶段后,逐步进入更为成熟和规范的发展方向。
[1] Salminen S, Collado M C, Endo A, et al. The International Scientific Association of Probiotics and Prebiotics (ISAPP) consensus statement on the definition and scope of postbiotics[J]. Nature Reviews Gastroenterology &Hepatology, 2021, 18(9):649-667.
[2] Smolinska S, Popescu F D, Zemelka-Wiacek M. A review of the influence of prebiotics, probiotics, synbiotics, and postbiotics on the human gut microbiome and intestinal integrity[J]. Journal of Clinical Medicine, 2025, 14(11):3673.
[3] Zaviši G, Risti S, Petri
 evi S, et al. Microbial contamination of food: Probiotics and postbiotics as potential biopreservatives[J]. Foods, 2024, 13(16):2487.
[4] 井昭轩, 梁配新, 韩雪梅, 等. 植物乳植杆菌IOB602后生元调节神经内分泌及肠道微生态改善小鼠抑郁样行为[J]. 食品科学, 2025, 46(14):168-178.Jing Z X, Liang P X, Han X M, et al. Lactiplantibacillus plantarum IOB602 postbiotic ameliorates depression-like behaviors by regulating neuroendocrine factors and gut microbiota in mice[J]. Food Science, 2025, 46(14):168-178.
[5] Scott E, de Paepe K, Van de Wiele T. Postbiotics and their health modulatory biomolecules[J]. Biomolecules, 2022, 12(11):1640.
[6] Ali Noori S M, Behfar A, Saadat A, et al. Antimicrobial and antioxidant properties of natural postbiotics derived from five lactic acid bacteria[J]. Jundishapur Journal of Natural Pharmaceutical Products, 2022, 18(1): e130785.
[7] Aghebati-Maleki L, Hasannezhad P, Abbasi A, et al. Antibacterial, antiviral, antioxidant, and anticancer activities of postbiotics: A review of mechanisms and therapeutic perspectives[J]. Biointerface Research in Applied Chemistry, 2021, 12(2): 2629-2645.
[8] Jalali S, Mojgani N, Haghighat S, et al. Investigation of antimicrobial and antioxidant properties of postbiotics produced by Lactobacillus rhamnosus and Limosilactobacillus reuteri and their potential application in surface decontamination of red meat[J]. LWT, 2024, 209:116758.
[9] Jastrząb R, Graczyk D, Siedlecki P. Molecular and cellular mechanisms influenced by postbiotics[J]. International Journal of Molecular Sciences, 2021, 22(24):13475.
[10] Szyd owska A, Sionek B. Probiotics and postbiotics as the functional food components affecting the immune response[J]. Microorganisms, 2022, 11(1):104.
[11] Ye ilyurt N, Y
 lmaz B, A
 agündüz D, et al. Involvement of probiotics and postbiotics in the immune system modulation[J]. Biologics, 2021, 1(2):89-110.
[12] Jeong W B, Kim Y S, Shin H Y, et al. Macrophage activation of postbiotics fractions prepared from lactic acid bacteria isolated from kimchi[J]. Current Topic in Lactic Acid Bacteria and Probiotics, 2024, 10(1):40-48.
[13] Li H Y, Zhou D D, Gan R Y, et al. Effects and mechanisms of probiotics, prebiotics, synbiotics, and postbiotics on metabolic diseases targeting gut microbiota: A narrative review[J]. Nutrients, 2021, 13(9):3211.
[14] Ayechu-Muruzabal V, Xiao L, Wehkamp T, et al. A fermented milk matrix containing postbiotics supports Th1- and Th17-type immunity in vitro and modulates the influenza-specific vaccination response in vivo in association with altered serum galectin ratios[J]. Vaccines, 2021, 9(3):254.
[15] Xie J Y, Li H, Zhang X A, et al. Akkermansia muciniphila protects mice against an emerging tick-borne viral pathogen[J]. Nature Microbiology, 2023, 8(1):91-106.
[16] Park M, Joung M, Park J H, et al. Role of postbiotics in diet-induced metabolic disorders[J]. Nutrients, 2022, 14(18):3701.
[17] Wu W M, Chen Z F, Han J N, et al. Endocrine, genetic, and microbiome nexus of obesity and potential role of postbiotics: A narrative review[J]. Eating and Weight Disorders - Studies on Anorexia, Bulimia and Obesity, 2023, 28(1):84.
[18] Cani P D, Knauf C. A newly identified protein from Akkermansia muciniphila stimulates GLP-1 secretion[J]. Cell Metabolism, 2021, 33(6):1073-1075.
[19] Yoon H S, Cho C H, Yun M S, et al. Akkermansia muciniphila secretes a glucagon-like peptide-1-inducing protein that improves glucose homeostasis and ameliorates metabolic disease in mice[J]. Nature Microbiology, 2021, 6(5):563-573.
[20] Xie M X, Ye J L, Chen H Q, et al. Effects and mechanisms of probiotics, prebiotics, synbiotics and postbiotics for the prevention and management of type 2 diabetes mellitus[J]. Food Reviews International, 2025, 41(7):2203-2218.
[21] Liu C, Cai T Y, Cheng Y L, et al. Postbiotics prepared using Lactobacillus reuteri ameliorates ethanol-induced liver injury by regulating the FXR/SHP/SREBP-1c axis[J]. Molecular Nutrition &Food Research, 2024, 68(14): e2300927.
[22] Arellano-García L I, Milton-Laskibar I, Martínez J A, et al. Comparative effects of viable Lactobacillus rhamnosus GG and its heat-inactivated paraprobiotic in the prevention of high-fat high-fructose diet-induced non-alcoholic fatty liver disease in rats[J]. BioFactors, 2025, 51: e2116.
[23] Park S J, Sharma A, Lee H J. Postbiotics against obesity: Perception and overview based on pre-clinical and clinical studies[J]. International Journal of Molecular Sciences, 2023, 24(7):6414.
[24] 郑立婷, 汪哲, 陈玉春, 等. 嗜黏蛋白阿克曼菌在非酒精性脂肪性肝病中的作用[J]. 临床肝胆病杂志, 2024, 40(3):594-599.Zheng L T, Wang Z, Chen Y C, et al. Role of Akkermansia muciniphila in nonalcoholic fatty liver disease[J]. Journal of Clinical Hepatology, 2024, 40(3):594-599.
[25] 李异轩, 任晓萌. 后生元的制备和营养作用的相关研究进展[J]. 中国微生态学杂志, 2025, 37(5):617-621.Li Y X, Ren X M. The preparation and nutritional effects of postbiotics: Research progress[J]. Chinese Journal of Microecology, 2025, 37(5):617-621.
[26] Aran K R, Porel P, Hunjan G, et al. Postbiotics as a therapeutic tool in Alzheimer’s disease: Insights into molecular pathways and neuroprotective effects[J]. Ageing Research Reviews, 2025, 106:102685.
[27] Chudzik A, Orzyowska A, Rola R, et al. Probiotics, prebiotics and postbiotics on mitigation of depression symptoms: Modulation of the brain-gut-microbiome axis[J]. Biomolecules, 2021, 11(7):1000.
[28] Zdybel K,  liwka A, Polak-Berecka M, et al. Postbiotics formulation and therapeutic effect in inflammation: A systematic review[J]. Nutrients, 2025, 17(13):2187.
[29] Bashir B, Alam S, Khandale N, et al. Opening avenues for treatment of neurodegenerative disease using post-biotics: Breakthroughs and bottlenecks in clinical translation[J]. Ageing Research Reviews, 2024, 95:102236.
[30] Abedin M M, Chourasia R, Phukon L C, et al. Lactic acid bacteria in the functional food industry: Biotechnological properties and potential applications[J]. Critical Reviews in Food Science and Nutrition, 2024, 64(29):10730-10748.
[31] 肖桂龙, 罗卫飞, 芦志龙, 等. 一种抗氧化、减脂和抑制肿瘤生长的广西阿克曼氏菌及其产品与应用: CN202310332284.3[P]. 2023-08-22. Xiao G L, Luo W F, Lu Z L, et al. An antioxidant, fat-reducing and tumor growth-inhibiting Akkermansia guangxiensis and its products and applications: CN202310332284.3 [P]. 2023-08-22.
[32] 罗卫飞,蒙丽丽,柴智慧, 等.一种延长寿命、抗衰老、减脂的罗伊氏乳杆菌及其产品与应用: CN202280067122.5 [P].2024-07-23. Luo W F, Meng L L, Chai Z H, et al. An Lactobacillus rhamnosus for extending lifespan, anti-aging, and fat reduction, its products and applications: CN118019840B[P]. 2024-07-23.
[33] 谢莹莹, 庞旭, 周海泳, 等. 后生元的作用机制及其在食品领域的应用[J]. 食品科学, 2024, 45(8):354-363.Xie Y Y, Pang X, Zhou H Y, et al. Action mechanisms of postbiotics and their applications in food field[J]. Food Science, 2024, 45(8):354-363.
[34] Rahman M M, Sazili A Q, Ahmad S A, et al. Inhibitory efficacy, production dynamics, and characterization of postbiotics of lactic acid bacteria[J]. BMC Microbiology, 2025, 25(1):485.
[35] Seara M F M De A. Sustainable production of postbiotics for food applications[D]. Porto: Universidade Catolica Portuguesa, 2023.
[36] Tong Y C, Guo H N, Abbas Z, et al. Optimizing postbiotic production through solid-state fermentation with Bacillus amyloliquefaciens J and Lactiplantibacillus plantarum SN4 enhances antibacterial, antioxidant, and anti-inflammatory activities[J]. Frontiers in Microbiology, 2023, 14:1229952.
[37] Almahbashi A, Gunes Altuntas E. From preparation to bioactivity: A comparative study on preparation methods and characterization of postbiotics[J]. Food Science &Nutrition, 2025, 13(5): e70294.
[38] G R S K, V M. Scaling up postbiotics production: A prospective review of processes and health benefits[J]. Probiotics and Antimicrobial Proteins, 2026, 18(2):2870-2889.
[39] Sun Z, Zhao Z, Fang B, et al. Effect of thermal inactivation on antioxidant, anti-inflammatory activities and chemical profile of postbiotics[J]. Foods, 2023, 12(19):3579.
[40] Zhu Y, Xiao M L, Kang T Y, et al. The role of inactivation methods in shaping postbiotic composition and modulating bioactivity: A review[J]. Foods, 2025, 14(13):2358.
[41] Porfiri L, Burtscher J, Kangethe R T, et al. Irradiated non-replicative lactic acid bacteria preserve metabolic activity while exhibiting diverse immune modulation[J]. Frontiers in Veterinary Science, 2022, 9:859124.
[42] 陆寒池, 于文皓, 于洋, 等. 后生元的生物功能及其应用研究进展[J]. 食品安全质量检测学报, 2025, 16(9):1-11.Lu H C, Yu W H, Yu Y, et al. Research progress on the biological functions and applications of postbiotics[J]. Journal of Food Safety &Quality, 2025, 16(9):1-11.
[43] 刘翠平, 叶蕾, 吴正钧, 等. 干酪乳杆菌LC2W胞外多糖提取工艺研究[J]. 华北农学报, 2008, 23(B10):118-121.Liu C P, Ye L, Wu Z J, et al. Optimization of preparation procedures for exopolysaccharides from Lactobacillus casei LC2W[J]. Acta Agriculturae Boreali-Sinica, 2008, 23(B10):118-121.
[44] Sørensen H M, Rochfort K D, Maye S, et al. Exopolysaccharides of lactic acid bacteria: Production, purification and health benefits towards functional food[J]. Nutrients, 2022, 14(14):2938.
[45] Asarat M, Vasiljevic T, Ravikumar M, et al. Extraction and purification of short-chain fatty acids from fermented reconstituted skim milk supplemented with inulin[J]. Food Analytical Methods, 2016, 9(11):3069-3079.
[46] Zheng X, Chen T, Li W L, et al. Rapid purification and quantification of intestinal and fecal short-chain fatty acids by solid-phase extraction using bond elut plexa[J]. Separations, 2024, 11(9):270.
[47] Ou C C, Lu T M, Tsai J J, et al. Antioxidative effect of lactic acid bacteria: Intact cells vs. intracellular extracts[J]. Journal of Food and Drug Analysis, 2010, 17(3): 6.
[48] Kim W, Lee E J, Bae I H, et al. Lactobacillus plantarum-derived extracellular vesicles induce anti-inflammatory M2 macrophage polarization in vitro[J]. Journal of Extracellular Vesicles, 2020, 9(1):1793514.
[49] Gao J, Li Y B, Wan Y, et al. A novel postbiotic from Lactobacillus rhamnosus GG with a beneficial effect on intestinal barrier function[J]. Frontiers in Microbiology, 2019, 10:477.
[50] 闫梦娜, 孙韵琪, 刘晴晴, 等. 发酵粘液乳杆菌IOB802对小鼠骨骼生长的影响[J]. 食品安全质量检测学报, 2024, 15(1):314-320.Yan M N, Sun Y Q, Liu Q Q, et al. Effects of Limosilactobacillus fermentum IOB802 on bone growth in mice[J]. Journal of Food Safety and Quality, 2024, 15(1):314-320.
[51] Abot A, Brochot A, Pomié N, et al. Pasteurized Akkermansia muciniphila improves glucose metabolism is linked with increased hypothalamic nitric oxide release[J]. Heliyon, 2023, 9(7): e18196.
[52] Fang H, Rodrigues e-Lacerda R, Barra N G, et al. Postbiotic impact on host metabolism and immunity provides therapeutic potential in metabolic disease[J]. Endocrine Reviews, 2025, 46(1):60-79.
[53] Fogacci F, Giovannini M, Di Micoli V, et al. Effect of supplementation of a butyrate-based formula in individuals with liver steatosis and metabolic syndrome: A randomized double-blind placebo-controlled clinical trial[J]. Nutrients, 2024, 16(15):2454.
[54] Zhang T, Zhang W Q, Feng C J, et al. Stronger gut microbiome modulatory effects by postbiotics than probiotics in a mouse colitis model[J]. npj Science of Food, 2022, 6:53.
[55] Abd El-Ghany W A. Paraprobiotics and postbiotics: Contemporary and promising natural antibiotics alternatives and their applications in the poultry field[J]. Open Veterinary Journal, 2020, 10(3):323-330.
[56] Ragavan M L, Hemalatha S. The functional roles of short chain fatty acids as postbiotics in human gut: Future perspectives[J]. Food Science and Biotechnology, 2024, 33(2):275-285.
[57] 肖灵, 唐琳琳, 宋晓妍, 等. 后生元调节肠道微生态及减少脑内β-淀粉样蛋白沉积改善阿尔茨海默病大鼠的认知障碍[J]. 食品科学, 2025, 46(5):182-193.Xiao L, Tang L L, Song X Y, et al. Postbiotics regulate intestinal microbiota and reduce amyloid β-protein deposition in the brain, thereby ameliorating cognitive impairment in rats with Alzheimer’s disease[J]. Food Science, 2025, 46(5):182-193.
[58] Cui H C, Feng C R, Guo C Q, et al. Development of novel topical anti-acne cream containing postbiotics for mild-to-moderate acne: An observational study to evaluate its efficacy[J]. Indian Journal of Dermatology, 2022, 67(6):667-673.
[59] da Silva Vale A, de Melo Pereira G V, de Oliveira A C, et al. Production, formulation, and application of postbiotics in the treatment of skin conditions[J]. Fermentation, 2023, 9(3):264.
[60] 袁会敏, 刘银辉. 后生元在皮肤健康与美容领域的开发与应用[J]. 中国微生态学杂志, 2023, 35(12):1475-1482.Yuan H M, Liu Y H. Development and application of postbiotics in skin health and beauty field[J]. Chinese Journal of Microecology, 2023, 35(12):1475-1482.
[61] Lentini G, Nigro F, Colucci Cante R, et al. Functional properties of an oat-based postbiotic aimed at a potential cosmetic formulation[J]. Fermentation, 2022, 8(11):632.
[62] Puebla-Barragan S, Reid G. Probiotics in cosmetic and personal care products: Trends and challenges[J]. Molecules, 2021, 26(5):1249.
[63] 李冠楠, 王海玲, 王小咪, 等. 益生菌和后生元制剂在化妆品和女性私护品中应用的机遇与挑战[J]. 微生物前沿, 2023(1):1-9.Li G N, Wang H L, Wang X M, et al. Opportunities and challenges of application of the probiotics/postbiotics in cosmetics and female personal care products[J]. Advances in Microbiology, 2023(1):1-9.
[64] Homayouni Rad A, Pourjafar H, Mirzakhani E. A comprehensive review of the application of probiotics and postbiotics in oral health[J]. Frontiers in Cellular and Infection Microbiology, 2023, 13:1120995.
[65] Molina D, Marinas I C, Angamarca E, et al. Postbiotic-based extracts from native probiotic strains: A promising strategy for food preservation and antimicrobial defense[J]. Antibiotics, 2025, 14(3):318.
[66] Isaac-Bamgboye F J, Mgbechidinma C L, Onyeaka H, et al. Exploring the potential of postbiotics for food safety and human health improvement[J]. Journal of Nutrition and Metabolism, 2024, 2024:1868161.
[67] Ramazanidoroh F, Hosseininezhad M, Shahrampour D, et al. Edible packaging as a functional carrier of prebiotics, probiotics, and postbiotics to boost food safety, quality, and shelf life[J]. Probiotics and Antimicrobial Proteins, 2024, 16(4):1327-1347.
[68] Khani N, Shakeri A H, Moosavy M H, et al. Potential application of postbiotics as a natural preservative in cheese[J]. Probiotics and Antimicrobial Proteins, 2026, 18(1):1512-1526.
[69] Morán J, Kilasoniya A. Integration of postbiotics in food products through attenuated probiotics: A case study with lactic acid bacteria in bread[J]. Foods, 2024, 13(13):2042.
[70] Abbasi A, Sabahi S, Bazzaz S, et al. An edible coating utilizing Malva sylvestris seed polysaccharide mucilage and postbiotic from Saccharomyces cerevisiae var. boulardii for the preservation of lamb meat[J]. International Journal of Biological Macromolecules, 2023, 246:125660.
[71] Mosallaie F, Falah F, Yazdi F T, et al. Development of postbiotic supplemented polylactic acid films for improving quality and shelf life of rainbow trout[J]. Scientific Reports, 2025, 15:24305.
[72] 王纪鹏, 虢有婕, 韩毅, 等. pH敏感性材料在智能食品包装中的应用进展[J]. 食品工业科技, 2023, 44(1):48-55.Wang J P, Guo Y J, Han Y, et al. Application progress of pH-sensitive materials in smart food packaging[J]. Science and Technology of Food Industry, 2023, 44(1):48-55.
[73] Hosseini S A, Abbasi A, Sabahi S, et al. Application of postbiotics produced by lactic acid bacteria in the development of active food packaging[J]. Biointerface Research in Applied Chemistry, 2021, 12(5):6164-6183.
[74] Rosales Cavaglieri L A, Isgro M C, Aminahuel C, et al. Exploring the potential of lactic acid bacteria to produce postbiotics with antimicrobial and antioxidant properties: Focus on the probiotic strain Pediococcus pentosaceus RC007 for industrial-scale production[J]. International Journal of Food Science and Technology, 2025, 60: vvae003.
[75] Thorakkattu P, Khanashyam A C, Shah K, et al. Postbiotics: Current trends in food and pharmaceutical industry[J]. Foods, 2022, 11(19):3094.
[76] 刘红霞,李雪利,吴秀英,等. 后生元研究进展及应用现状[J]. 食品科学, 2024, 45(1): 326-333. Liu H X, Li X L, Wu X Y, et al. Progress on research and application of postbiotics[J]. Food Science, 2024(1):326-333.