1,6-己二胺(1,6-hexanediamine,1,6-HMD)是尼龙66等聚酰胺材料的重要单体,也可作为聚氨酯等材料链条中的关键中间体,具有广泛的工业应用前景[1-2]。目前工业生产仍以己二腈路线为主,通常涉及丁二烯氢氰化等过程并伴随剧毒氢氰酸的使用,带来较大的安全与环保压力[3-4];同时,己二腈的规模化产能与关键工艺长期集中于少数企业,进一步加剧了下游原料供应的不确定性与成本波动[1,5-7]。在此背景下,开发条件温和、环境友好且具备可持续原料耦合潜力的1,6-HMD生物法合成路线具有重要意义[6]。
当前,面向1,6-HMD的生物制造研究主要集中于全细胞转化策略与酶催化级联反应策略。在前一类研究中,研究者通过代谢工程改造或人工通路设计,实现了以L-赖氨酸等底物为起点的1,6-HMD生物合成,为1,6-HMD的生物法制备提供了可行性基础[8]。酶催化方面,Fedorchuk等[9]报道了以羧酸还原酶(carboxylic acid reductase,CAR)与转氨酶(transaminase,TA)为核心的级联反应,可由己二酸(adipic acid, AA)经6-氨基己酸(6-aminocaproic acid, 6-ACA)实现向1,6-HMD的转化;现有研究报道的纯化酶级联体系需要对关键酶进行分离纯化,且酶用量较大,放大应用时带来的成本压力较为突出[10-11]。为降低成本并提升体系可操作性,Wang等[12]采用全细胞催化策略,将级联所需关键酶在宿主细胞内表达并实现体内耦合转化,从而避免了酶纯化步骤;但该体系仍可能受细胞膜传质与跨膜转运效率的限制,1,6-HMD滴度达到238.5 mg/L。
近年来,无细胞催化体系逐渐成为构建多酶级联反应的重要实现形式,其通过体外组装关键酶模块,使反应体系摆脱细胞生长状态与代谢网络波动的影响,便于对级联步骤进行模块化组合与条件优化,从而提升通量传递可控性与动力学匹配效率[13-15]。对于1,6-HMD的合成而言,无细胞体系还可绕开细胞膜传质与跨膜转运限制,降低产物在胞内滞留引发的胺类毒性与应激效应,从而更有利于级联通量向终产物方向传递。
基于上述背景,本研究以AA为起始底物开展1,6-HMD的生物合成研究。AA作为大宗化工原料,工业供应成熟、来源稳定且成本优势明显,并与尼龙产业链高度耦合,具有作为生物制造底物的现实可获得性与工艺衔接潜力。在此基础上,本研究围绕AA到1,6-HMD的级联生物转化开展元件适配与无细胞催化体系构建,重点解决级联反应各步骤之间的动力学匹配问题。
1 材料与方法
1.1 材料和试剂
1.1.1 菌株和质粒
CAR与TA基因分别克隆至表达载体pRSFDuet-1,并转化至大肠杆菌BL21(DE3)/ΔsthA(本实验室保藏)进行异源表达。其中,sthA为编码可溶性吡啶核苷酸转氢酶基因,该酶参与NADH与NADPH之间的还原当量转移。考虑到SthA可促进NADPH消耗,为降低体系中NADPH损失,本研究采用sthA敲除菌株[16]。相关菌株与质粒信息见表1。
表1 菌株和质粒
Table 1 Strains and plasmids
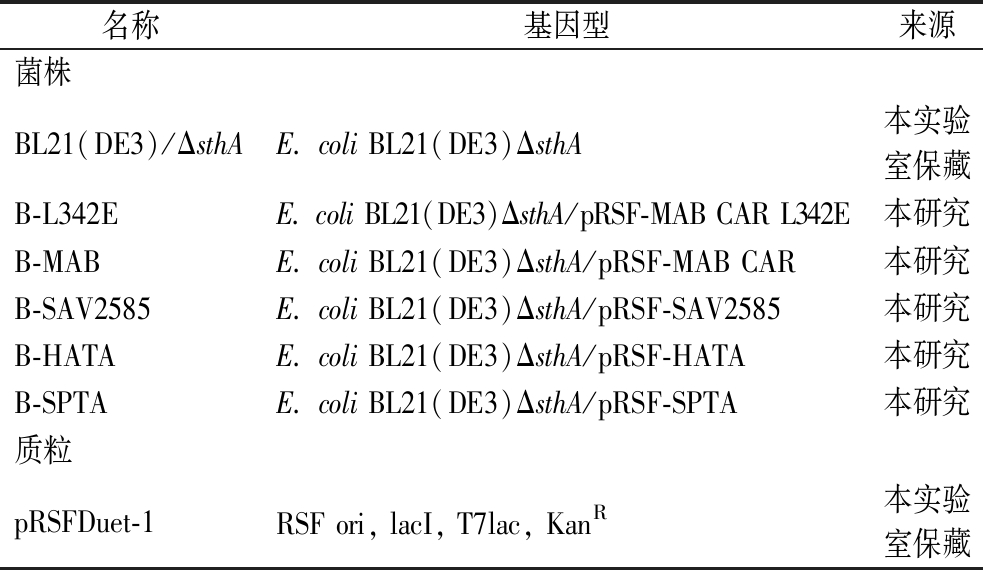
名称基因型来源菌株BL21(DE3)/ΔsthAE. coli BL21(DE3)ΔsthA本实验室保藏B-L342EE. coli BL21(DE3)ΔsthA/pRSF-MAB CAR L342E本研究B-MABE. coli BL21(DE3)ΔsthA/pRSF-MAB CAR本研究B-SAV2585E. coli BL21(DE3)ΔsthA/pRSF-SAV2585本研究B-HATAE. coli BL21(DE3)ΔsthA/pRSF-HATA本研究B-SPTAE. coli BL21(DE3)ΔsthA/pRSF-SPTA本研究质粒pRSFDuet-1RSF ori, lacI, T7lac, KanR本实验室保藏
1.1.2 试剂
葡萄糖、NaCl、CaCl2、磷酸吡哆醛(pyridoxal phosphate, PLP)、乙氧基甲叉丙二酸二乙酯(diethyl ethoxymethylenemalonate, DEEMM)、甲醇、硼酸、乙腈,国药集团化学试剂有限公司;胰蛋白胨、酵母粉,英国Oxoid公司。硫酸卡那霉素、异丙基-β-D-硫代半乳糖苷(isopropyl-beta-D-thiogalactopyranoside,IPTG),生工生物工程(上海)股份有限公司;腺嘌呤核苷三磷酸(adenosine triphosphate,ATP),北京伊诺凯科技有限公司;还原型烟酰胺腺嘌呤二核苷酸磷酸(nicotinamide adenine dinucleotide phosphate, NADPH),上海源叶生物科技有限公司;二硫苏糖醇(dithiothreitol, DTT),上海碧云天生物技术有限公司。
1.1.3 培养基
LB培养基(g/L):蛋白胨10、酵母提取物5、NaCl 10。
发酵培养基(g/L):葡萄糖2、蛋白胨10、酵母提取物5、NaCl 10。
以上固体培养基另加琼脂20 g/L。抗生素按实验需求添加。
1.1.4 实验仪器
UH-06高压均质破碎仪,上海永联生物科技有限公司;ST16R高速冷冻离心机,美国Thermo Fisher Scientific公司;Mastercycler PCR仪、5804R高速离心机,德国Eppendorf SE公司;DYY-6C蛋白电泳仪,北京六一电泳仪厂;GelDoc凝胶成像系统,美国Bio-Rad Laboratories公司;Cytation 3多功能酶标仪,美国BioTek公司;1260 Infinity Ⅱ高效液相色谱仪,美国安捷伦技术有限公司。
1.2 实验方法
1.2.1 CAR与TA的适配性组装
参考相关文献报道,选择2种CAR与3种TA用于纯酶体系的适配性组装。羧酸还原酶为MAB CAR[来源于脓肿分枝杆菌(Mycobacteroides abscessus)]及其突变体MAB CAR L342E,转氨酶为SAV2585[来源于阿维链霉菌(Streptomyces avermitilis)]、HATA[来源于产气哈夫尼亚菌(Hafnia alvei)]和SPTA[来源于海洋硅杆菌(Silicibacter pomeroyi)]。上述基因均构建于表达质粒pRSFDuet-1,并在大肠杆菌BL21(DE3)/ΔsthA中表达。目标蛋白采用Ni-NTA亲和层析进行纯化,具体操作参照上海生工1 mL Ni-NTA 6FF预装重力柱说明书。
1.2.2 培养条件与酶表达
种子液培养:将菌株划线接种于含硫酸卡那霉素的LB固体培养基上,于37 ℃培养至出现单菌落。挑取单菌落接种至LB液体培养基(含硫酸卡那霉素)中,置于37 ℃、250 r/min 摇床培养10 h,得到种子液。
摇瓶培养与诱导表达:将种子液按2%(体积分数)的接种量转接至100 mL发酵液体培养基(含卡那霉素)中,于37 ℃、250 r/min振荡培养1.5~2.5 h;当OD600值达到0.6时加入IPTG诱导(1 mol/L储备液加入60 μL,终浓度0.6 mmol/L),随后将培养温度降至30 ℃,250 r/min 继续培养12 h(自诱导起计时)。
1.2.3 纯酶催化体系构建
纯酶催化反应在Tris-HCl缓冲液(100 mmol/L,pH 7.5)中进行。反应体系总体积为4 mL,包含MgCl2 10 mmol/L、DTT 0.1 mmol/L、PLP 1 mmol/L、ATP 100 mmol/L、NADPH 100 mmol/L,谷氨酸、丙氨酸、天冬氨酸各50 mmol/L(作为氨基供体),以及底物AA 100 mmol/L。纯化后所得CAR与TA酶液质量浓度约为8~12 mg/mL,根据各批次酶液的实测浓度折算加入体积,使2种酶在反应体系中的终质量浓度均为3 mg/mL。各组分混匀并将pH值调至7.5后,于30 ℃、250 r/min条件下振荡反应。
1.2.4 无细胞催化体系构建
蛋白表达结束后,收集菌体并用Tris-HCl缓冲液(100 mmol/L,pH 7.5)洗涤,随后重悬并浓缩至OD600nm为150。采用高压均质破碎仪在60~70 MPa条件下处理6 min,离心去除不溶性物质后收集上清液,作为无细胞粗酶催化剂备用。无细胞催化反应体系以Tris-HCl缓冲液为溶剂并将pH值调至7.5,总体积为4 mL,体系中包含MgCl2、DTT、PLP、ATP、NADPH、氨基供体以及底物AA,并加入一定比例的无细胞粗酶催化剂。收获无细胞催化剂中酶质量浓度约为10~20 mg/mL,根据各批次粗酶液的实测浓度折算加入体积,使CAR与TA在反应体系中的终质量浓度分别为3、1.5 mg/mL;其余各组分的具体质量浓度与催化剂加入比例见结果部分对应条件。反应在30 ℃、250 r/min 条件下振荡进行。
1.2.5 己二胺无细胞催化强化
在无细胞催化体系基础上,分别设置底物浓度、氨基供体浓度、ATP浓度、NADPH浓度进行单因素优化。除考察因素外,其余条件保持一致。
1.2.6 产物检测
反应样品经DEEMM法衍生化后,采用HPLC定量检测6-ACA与1,6-HMD[17]。每组实验至少平行重复3次,结果以“平均值±标准差”表示。
1.3 数据处理与分析
实验数据采用GraphPad Prism软件进行数据统计分析和图表绘制,结果以“平均值±标准差”表示。所有实验均设置3次平行重复。
2 结果与分析
2.1 CAR与TA的适配性组装
如图1-a所示,本研究构建了由CAR与TA交替催化的“CAR-TA-CAR-TA”级联反应路径,以实现AA向1,6-HMD的定向转化。具体而言,AA首先在CAR作用下经ATP和NADPH依赖的羧基还原生成己二酸半醛(adipic semialdehyde,ASA),随后在TA催化下完成首次氨基转移生成6-ACA;之后6-ACA进一步在CAR作用下被还原为6-氨基己醛(6-aminohexanal,6-AHA),最终经TA催化生成目标产物1,6-HMD。该过程中包含2次羧基还原和2次转氨反应,不仅涉及ATP、NADPH以及氨基供体的持续参与,还要求CAR与TA分别对不同阶段底物和中间体具备良好的催化活性与衔接能力。因此,级联体系的整体表现不仅取决于单个酶的催化能力,还受到上下游步骤之间通量匹配程度的显著影响;若前后反应速率不协调,则容易导致中间体积累,从而限制终产物生成[18]。因此,首先对候选CAR与TA进行了适配性组装筛选。
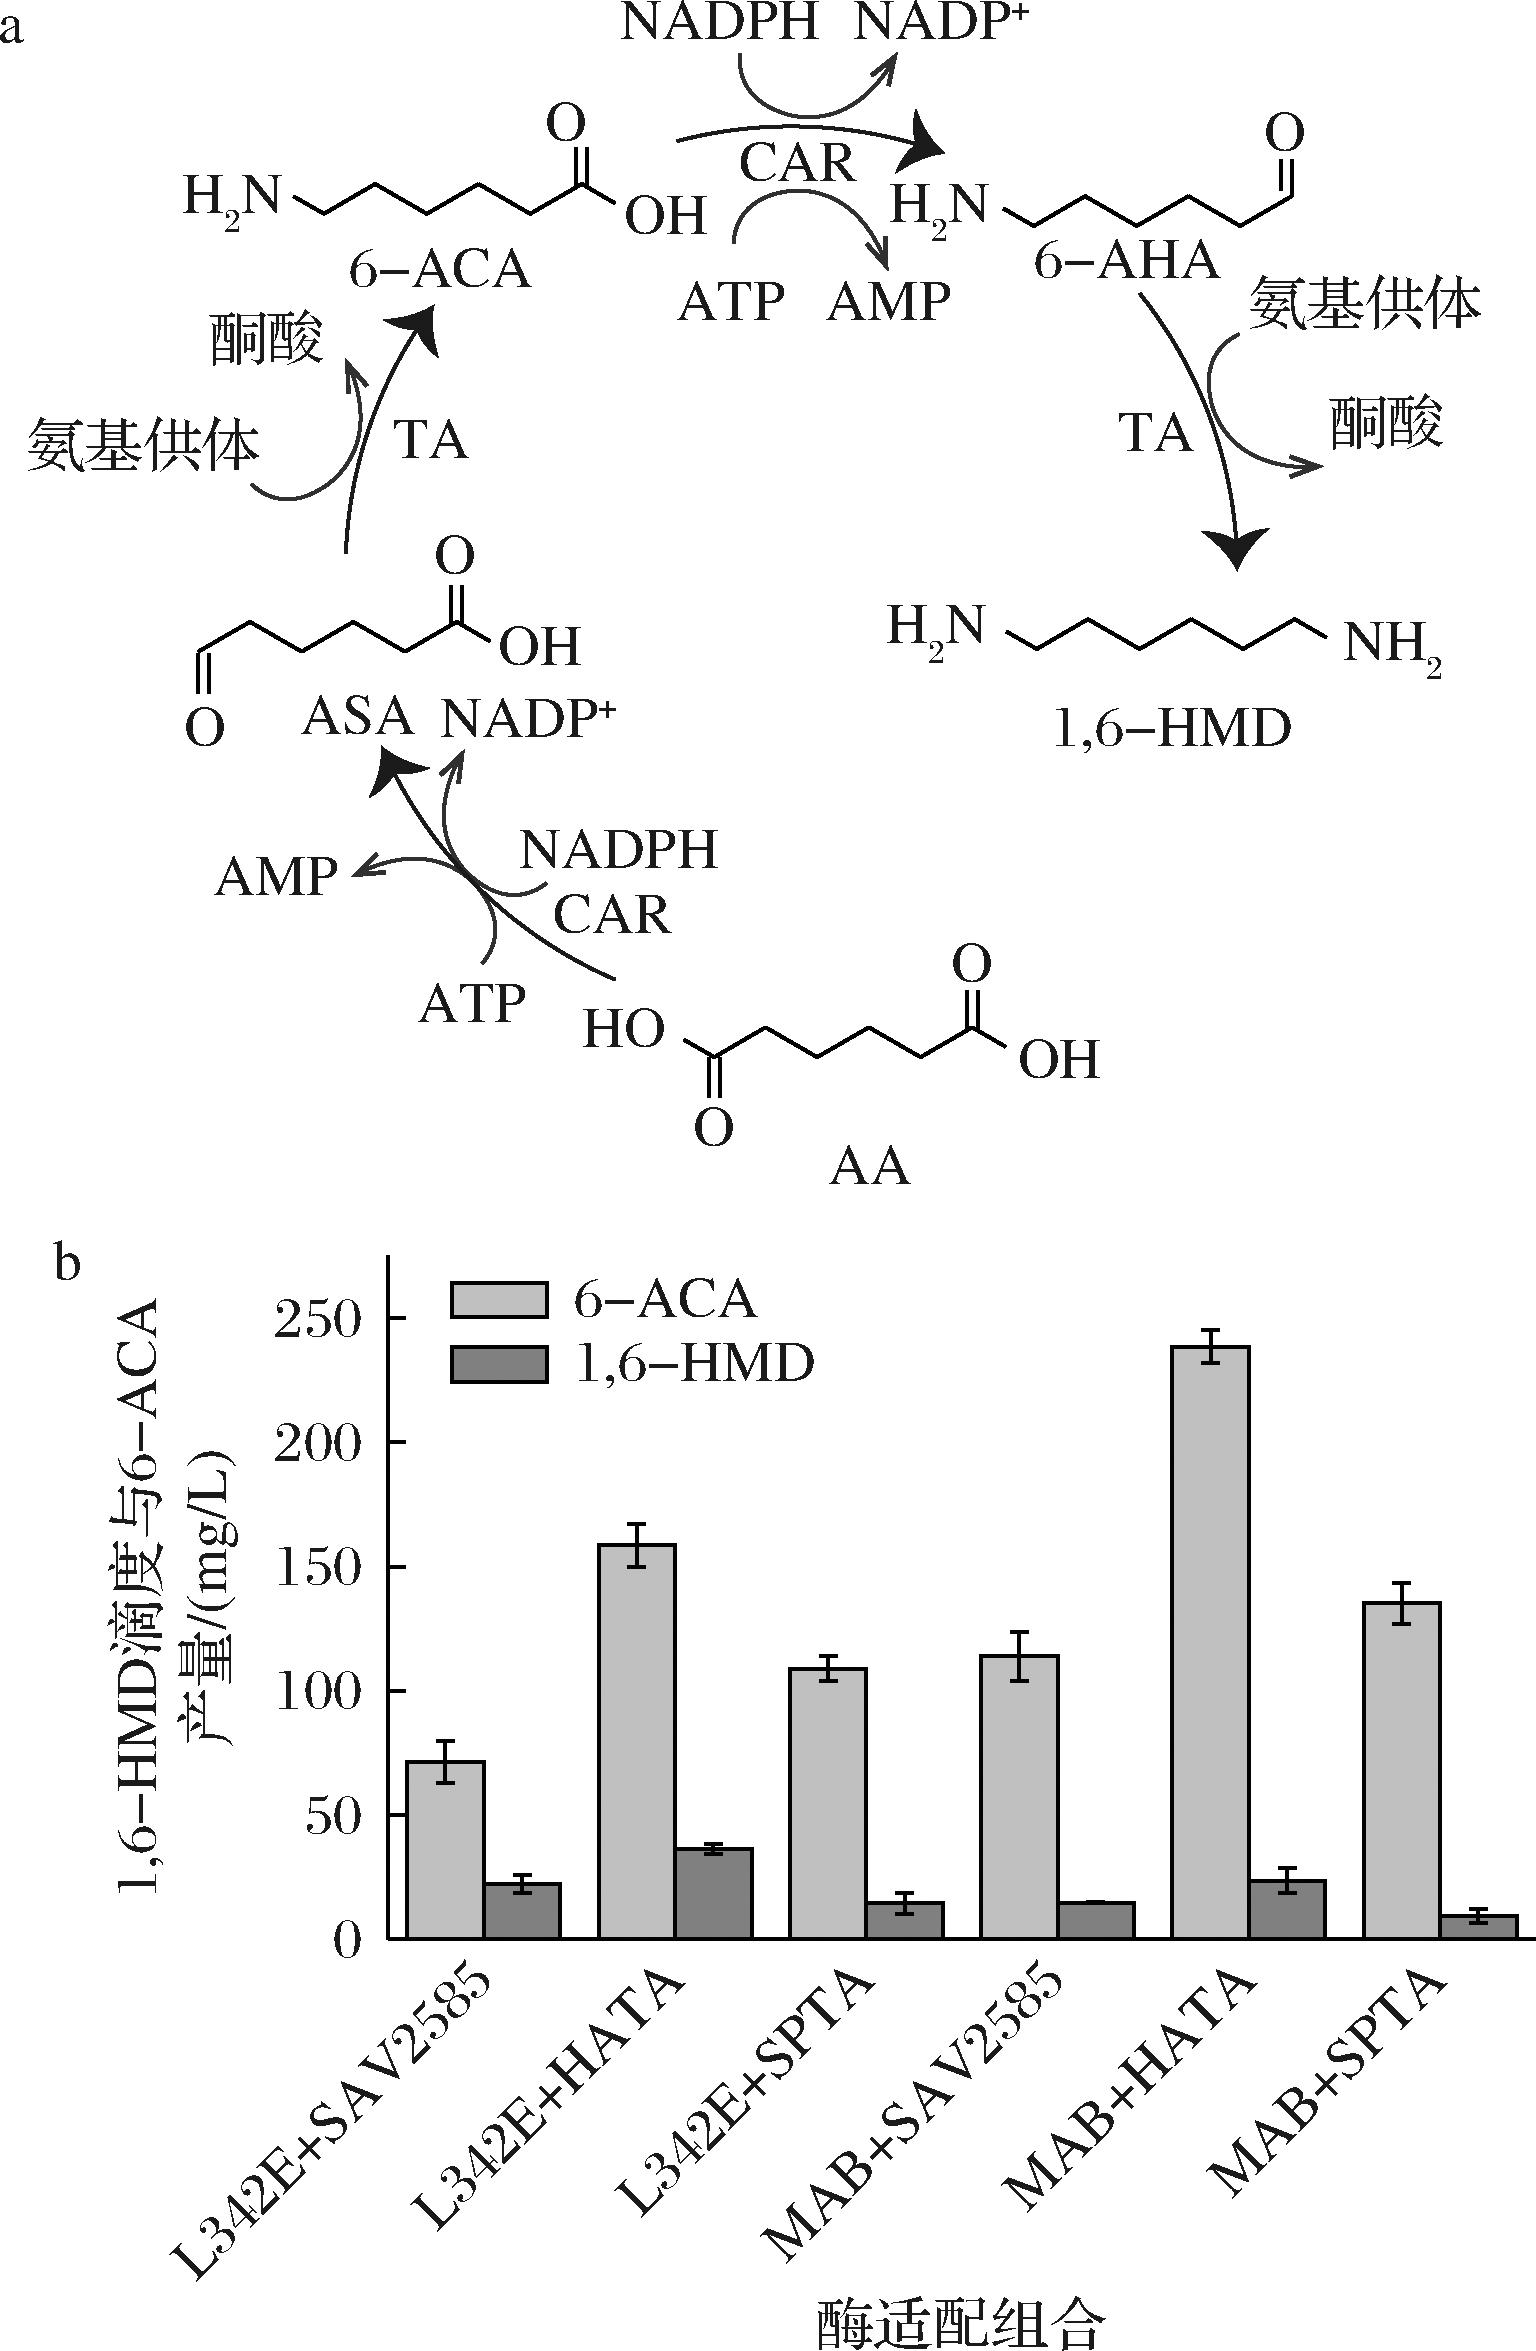
a-级联反应路径示意图;b-不同CAR与TA组合的1,6-HMD生成与6-ACA积累对比
图1 AA到1,6-HMD的“CAR-TA-CAR-TA”级联反应路径示意图及CAR与TA的适配性组装结果
Fig.1 Schematic of the “CAR-TA-CAR-TA” cascade from AA to 1,6-HMD and compatibility screening of CAR/TA combinations
如图1-b所示,不同CAR与TA组合的产物分布存在明显差异。其中,L342E与HATA组合获得最高1,6-HMD滴度36.5 mg/L,而MAB CAR与HATA组合则产生最高6-ACA积累量(236.8 mg/L)。该结果表明,酶组合差异不仅影响AA进入通路的效率,也决定了反应通量是停留于中间体阶段还是进一步流向终产物。综合1,6-HMD生成与6-ACA积累情况,L342E与HATA表现出更优的级联适配性,因此被选作后续无细胞催化体系构建的核心酶组合。
2.2 无细胞催化体系的应用
为降低纯化酶制备与分离带来的成本,并减少纯化过程引起的活性损失,本研究引入无细胞催化系统对级联反应进行构建与评估。对比结果表明,无细胞催化系统中6-ACA可被更有效地转化,1,6-HMD的积累显著提高。与纯化酶催化体系相比,无细胞催化系统在产物分布上表现出更明显的终产物导向特征,说明该体系更有利于缓解中间体积累并促进反应通量向1,6-HMD方向传递。其中,L342E+HATA组合的1,6-HMD滴度达到329.7 mg/L(图2)。推测其原因可能在于CAR通常以四聚体等寡聚体形式发挥催化活性,而无细胞体系可较好地保留细胞内环境对酶天然构象及寡聚化状态的支持作用,使 CAR维持相对完整的活性构象;相比之下,纯化过程中脱离了原有的细胞内环境,蛋白构象可能趋于松散甚至部分失活,进而降低其催化周转效率,导致中间体未能及时转化而发生累积[9]。同时,无细胞体系中内源代谢活性可能对无机磷酸、焦磷酸及转氨生成的酮酸等副产物起到一定消耗或缓冲作用,进一步促进级联反应向终产物推进[19]。此外,无细胞催化环境还可在一定程度上保留胞内原有的酶促微环境与辅助代谢功能,从而提升级联反应各步骤之间的动力学衔接效率。因此,后续研究以无细胞催化系统为平台,选用L342E与HATA作为核心酶组合开展进一步优化。
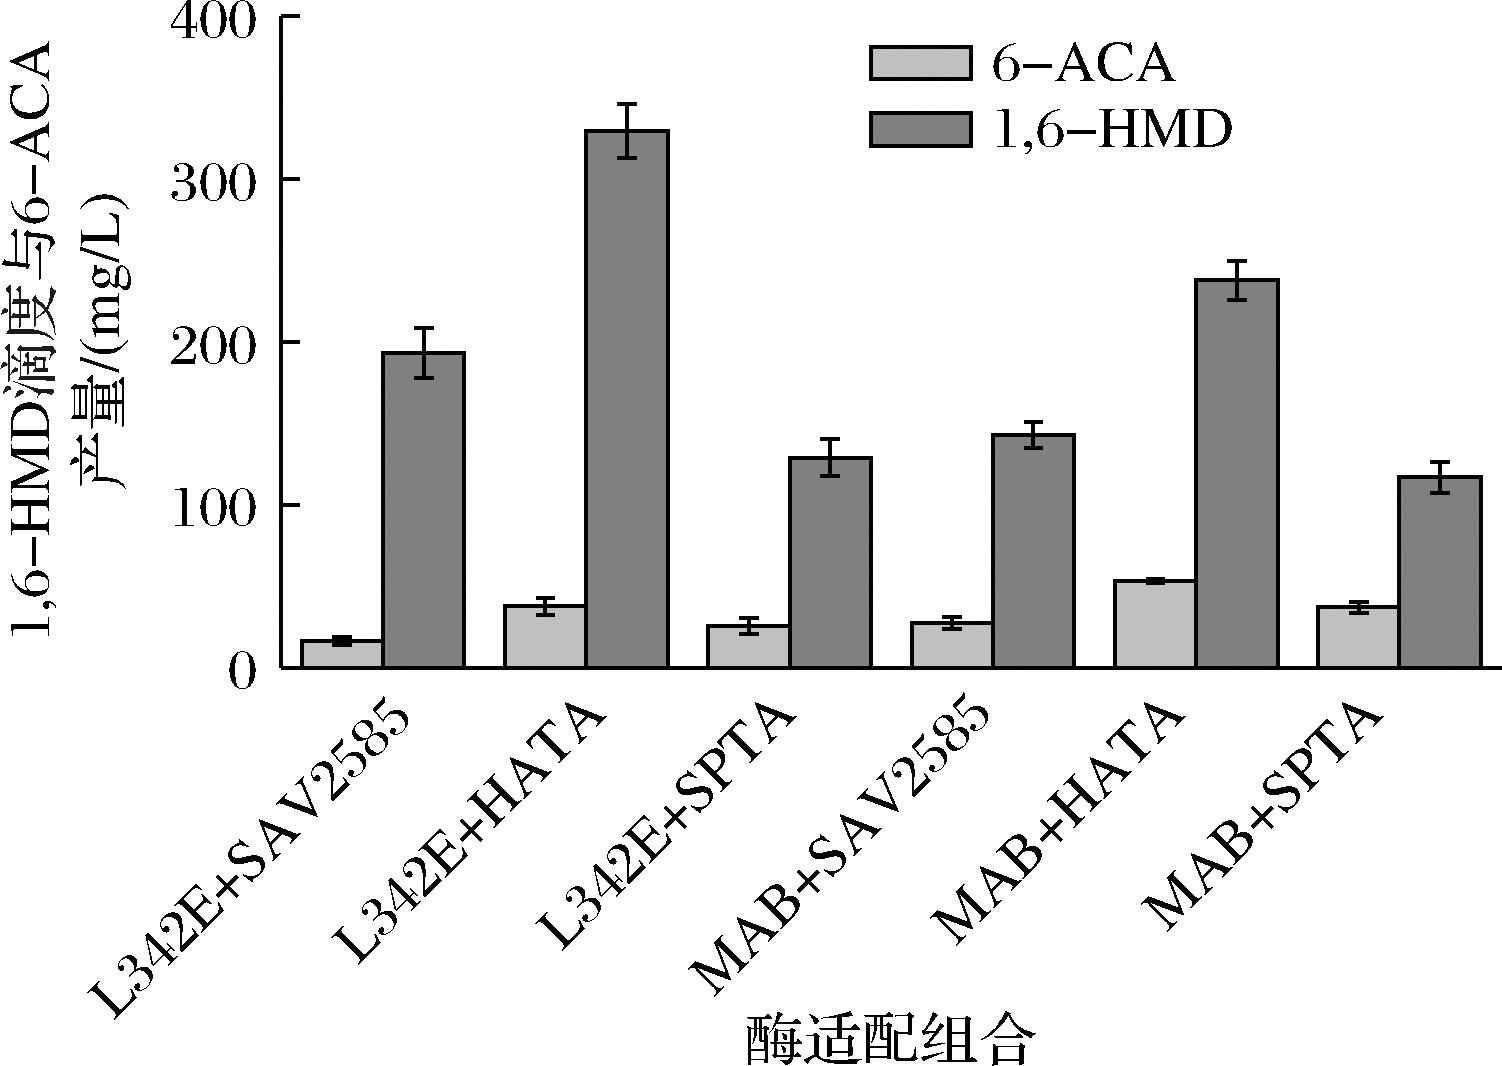
图2 无细胞体系催化6-ACA与1,6-HMD的生成情况
Fig.2 Formation of 6-ACA and 1,6-HMD catalyzed by the cell-free system
2.3 无细胞催化体系己二胺合成过程强化
2.3.1 ATP浓度对1,6-HMD生成及6-ACA积累的影响
ATP参与羧酸活化过程,是AA进入还原通路并驱动后续反应推进的关键辅助因子。在无细胞催化系统中对ATP浓度进行梯度优化发现,1,6-HMD滴度随ATP浓度升高呈先升高后降低的变化趋势。当ATP浓度由低水平逐步提高时,体系中AA向终产物方向的转化效率明显增强。当ATP浓度为60 mmol/L时,1,6-HMD滴度最高,为388.2 mg/L(图3)。当ATP浓度较低时,6-ACA大量积累,同时1,6-HMD生成受限。其中,ATP浓度为15 mmol/L时,6-ACA积累达到最高值169.2 mg/L,而1,6-HMD积累仅为55.2 mg/L,说明ATP供给不足会限制下游还原步骤周转,使反应通量更容易滞留于中间体阶段。随着ATP浓度提高至适宜范围,中间体可被进一步有效转化为1,6-HMD,从而降低6-ACA积累并提升终产物水平。ATP过量时1,6-HMD滴度下降,可能与体系离子强度升高、Mg2+配位平衡改变或关键酶活受抑等因素相关[20]。综合来看,适宜的ATP供给对于维持羧酸活化效率、促进中间体持续转化并提高1,6-HMD积累具有重要作用。
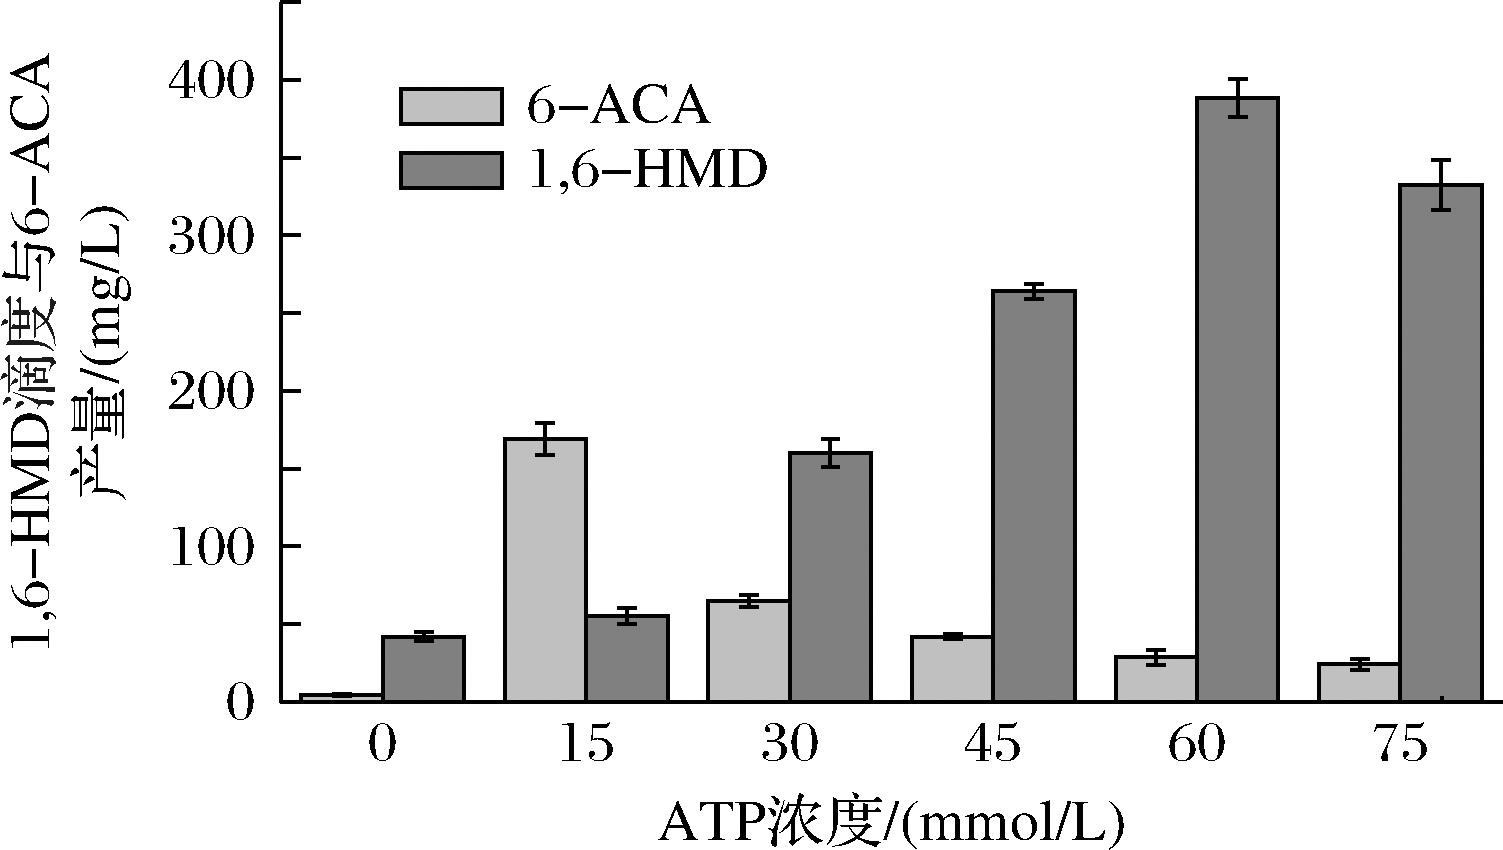
图3 ATP浓度对1,6-HMD生成及6-ACA积累的影响
Fig.3 Effects of ATP concentration on 1,6-HMD formation and 6-ACA accumulation
2.3.2 NADPH浓度对级联反应的影响
NADPH是CAR催化过程中必需的还原型辅助因子,为羧酸还原步骤持续提供还原当量,其供给水平直接关系到AA能否顺利进入还原通路,并进一步影响整个级联体系的通量传递效率[10]。在AA向1,6-HMD的转化过程中,还原步骤不仅决定前体中间体的生成速率,也在很大程度上影响后续转氨反应是否能够连续、高效地进行。因此,NADPH浓度既关系到单步羧酸还原反应的推进程度,也会对整个级联体系的动态平衡产生重要影响。适宜的NADPH供给有利于维持较高的还原通量,促进中间体持续生成并向终产物方向转化;而当还原当量不足时,前端还原步骤受限,AA向后续中间体及终产物的转化效率将受到抑制。对NADPH浓度进行梯度考察发现,1,6-HMD滴度随NADPH浓度升高呈先升高后降低的趋势。当NADPH浓度为15 mmol/L时,1,6-HMD滴度达到最高值,为421.7 mg/L(图4)。进一步提高NADPH浓度,1,6-HMD滴度下降,说明过量还原当量输入可能导致体系氧化还原环境偏移或产生非特异性抑制效应,从而不利于级联反应稳定运行。这表明NADPH浓度需要控制在适宜范围内,以兼顾羧酸还原效率与级联体系运行稳定性。因此,后续实验选择15 mmol/L NADPH作为适宜浓度。
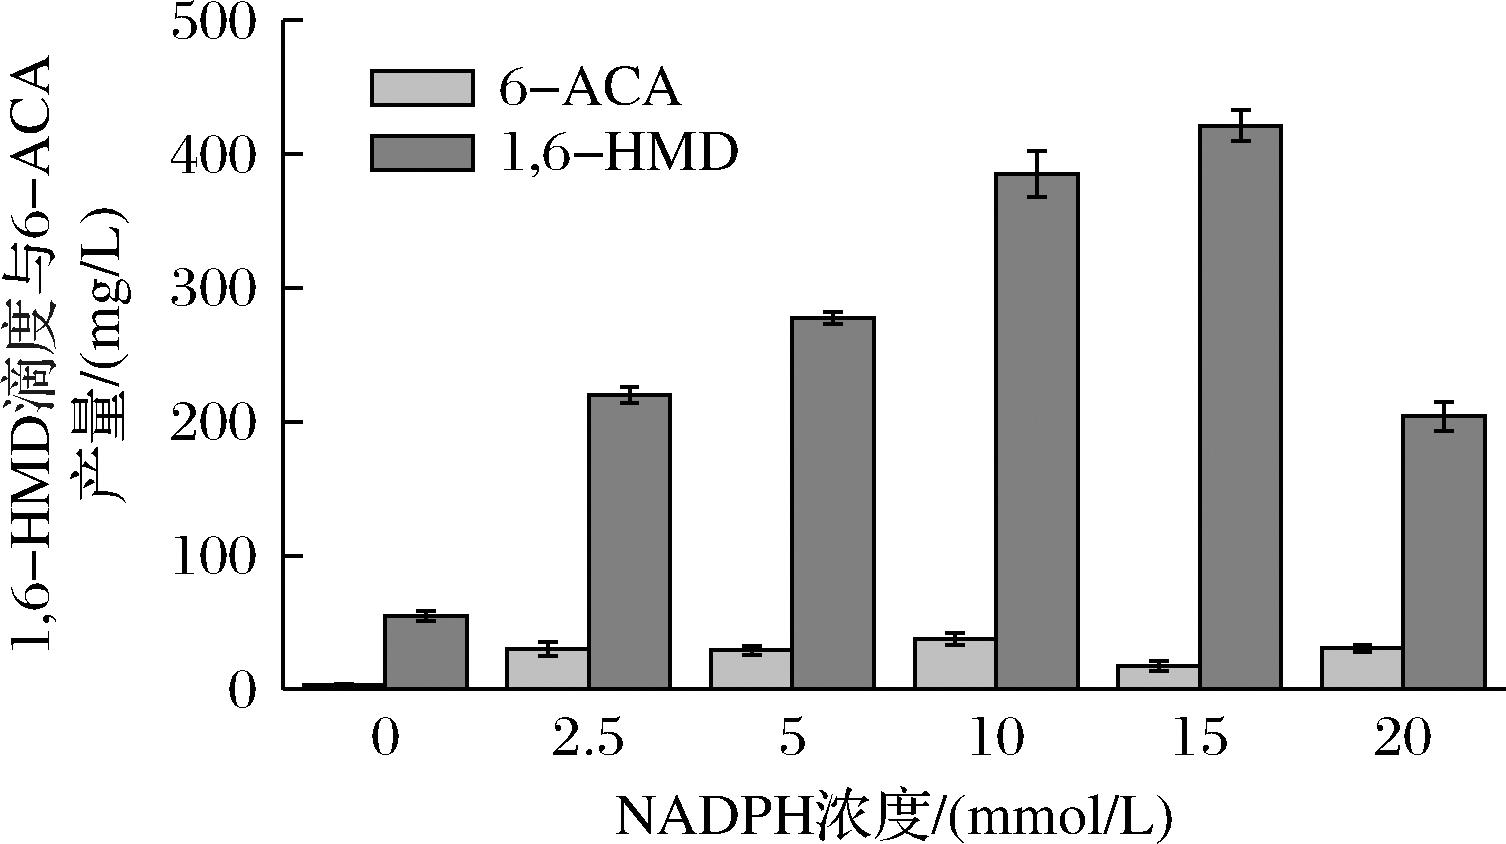
图4 NADPH浓度对1,6-HMD生成的影响
Fig.4 Effects of NADPH concentration on 1,6-HMD formation
2.3.3 氨基供体浓度对1,6-HMD生成的影响
氨基供体是转氨反应顺利进行所必需的关键组分,在该级联体系中为两步转氨过程持续提供氨基来源,其供给水平将直接影响中间体向氨基化产物的转化效率[21]。由于AA到1,6-HMD的转化过程中包含连续的转氨步骤,氨基供体浓度不仅关系到单步反应是否能够充分进行,还会进一步影响整个级联体系的通量衔接和平衡状态。适宜的氨基供体水平有利于维持转氨反应持续推进,从而促进中间体及时消耗并提高终产物积累;而当供体不足时,转氨步骤容易成为限制环节,导致反应通量受阻并引发中间体堆积。基于此,对不同氨基供体浓度下1,6-HMD的生成情况进行了考察。结果表明,1,6-HMD滴度随氨基供体浓度升高呈先升高后降低的变化趋势。在较低浓度条件下,氨基供体不足以支持转氨反应持续进行,因而限制了中间体向终产物的进一步转化。当氨基供体浓度为60 mmol/L时,1,6-HMD滴度达到最高值,为461.4 mg/L(图5)。上述结果表明,氨基供体不足会限制转氨步骤并导致中间体积累,而供体过量可能降低体系整体反应效率。这说明氨基供体浓度需要控制在适宜范围内,以保证转氨步骤与前后反应过程保持较好的衔接效率,从而促进1,6-HMD的持续积累。因此,后续实验选择60 mmol/L氨基供体作为适宜浓度。
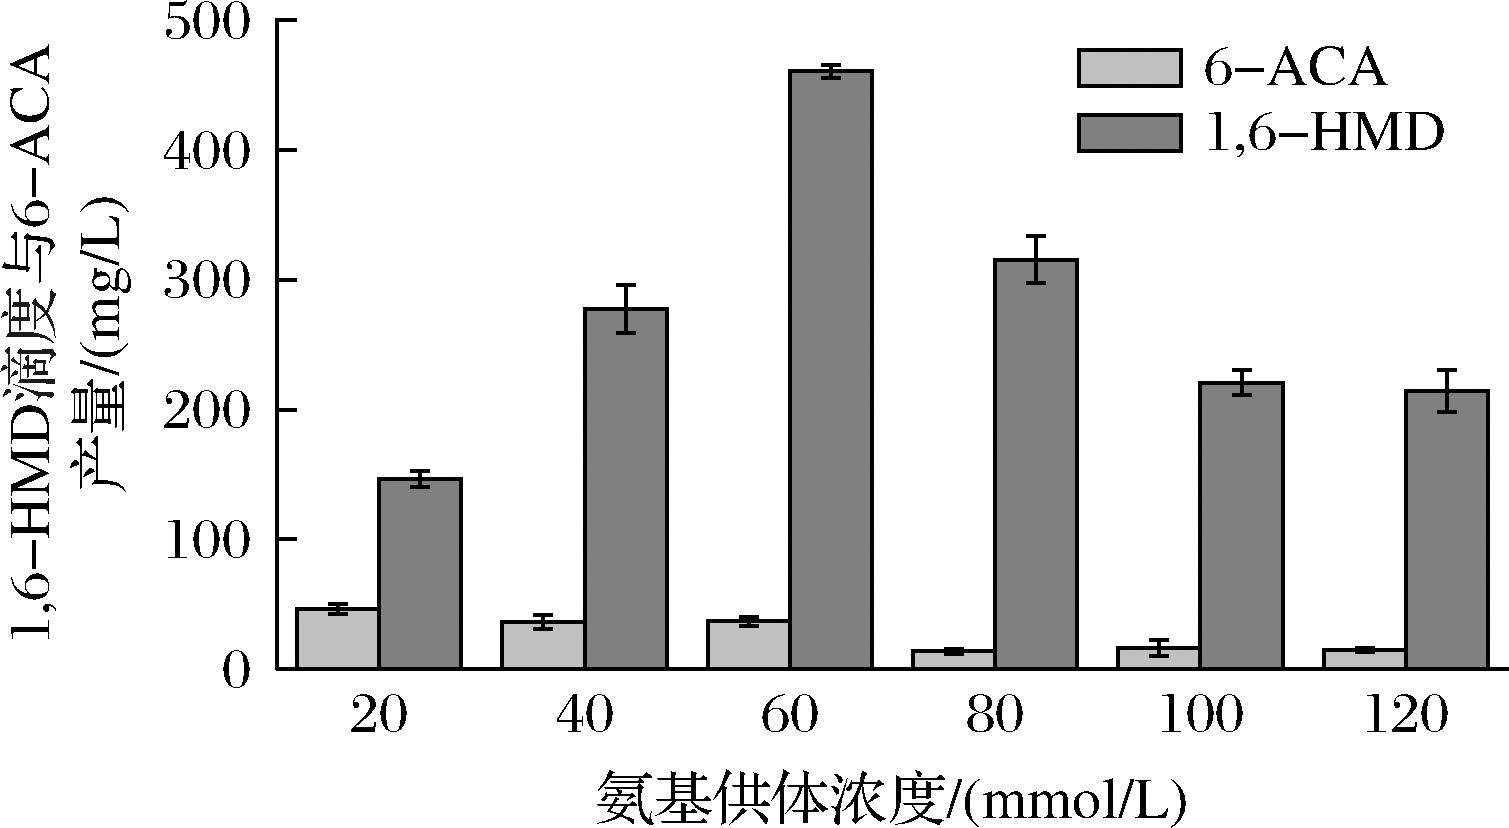
图5 氨基供体浓度对1,6-HMD生成及6-ACA积累的影响
Fig.5 Effects of amino donor concentration on 1,6-HMD formation and 6-ACA accumulation
2.3.4 底物浓度对HMD生成的影响
AA是该多酶级联体系中反应通量的起点,其浓度变化会同时影响底物转化驱动力、关键中间体生成速率以及后续步骤的衔接效率。对于以连续还原和转氨为特征的级联反应而言,适宜的底物浓度有利于维持各步骤之间相对协调的通量传递,从而促进终产物1,6-HMD的持续积累。然而,当AA浓度过低时,体系缺乏足够的底物供给,难以支撑较高水平的产物形成;而当AA浓度过高时,则可能导致前端反应通量过快输入,使后续步骤无法及时完成中间体消耗,最终表现为级联失衡和整体转化效率下降。基于此,对不同底物浓度条件下的1,6-HMD生成情况进行了考察。结果显示,当底物浓度为40 mmol/L时,1,6-HMD滴度达到最高值,为536.1 mg/L(图6)。由于AA转化为1,6-HMD的理论化学计量关系为1∶1,即1 mol AA理论上可生成1 mol 1,6-HMD,因此按1,6-HMD生成量与AA初始投料量计算,该条件下1,6-HMD对AA的摩尔转化率为11.5%。随着底物浓度进一步升高,1,6-HMD滴度下降。上述结果表明,在较高底物负荷下两步反应通量匹配不足导致中间体堆积;此外,底物浓度过高也可能引发一定的底物抑制效应,从而降低整体反应效率[22]。因此,后续实验选择40 mmol/L AA作为适宜底物浓度。
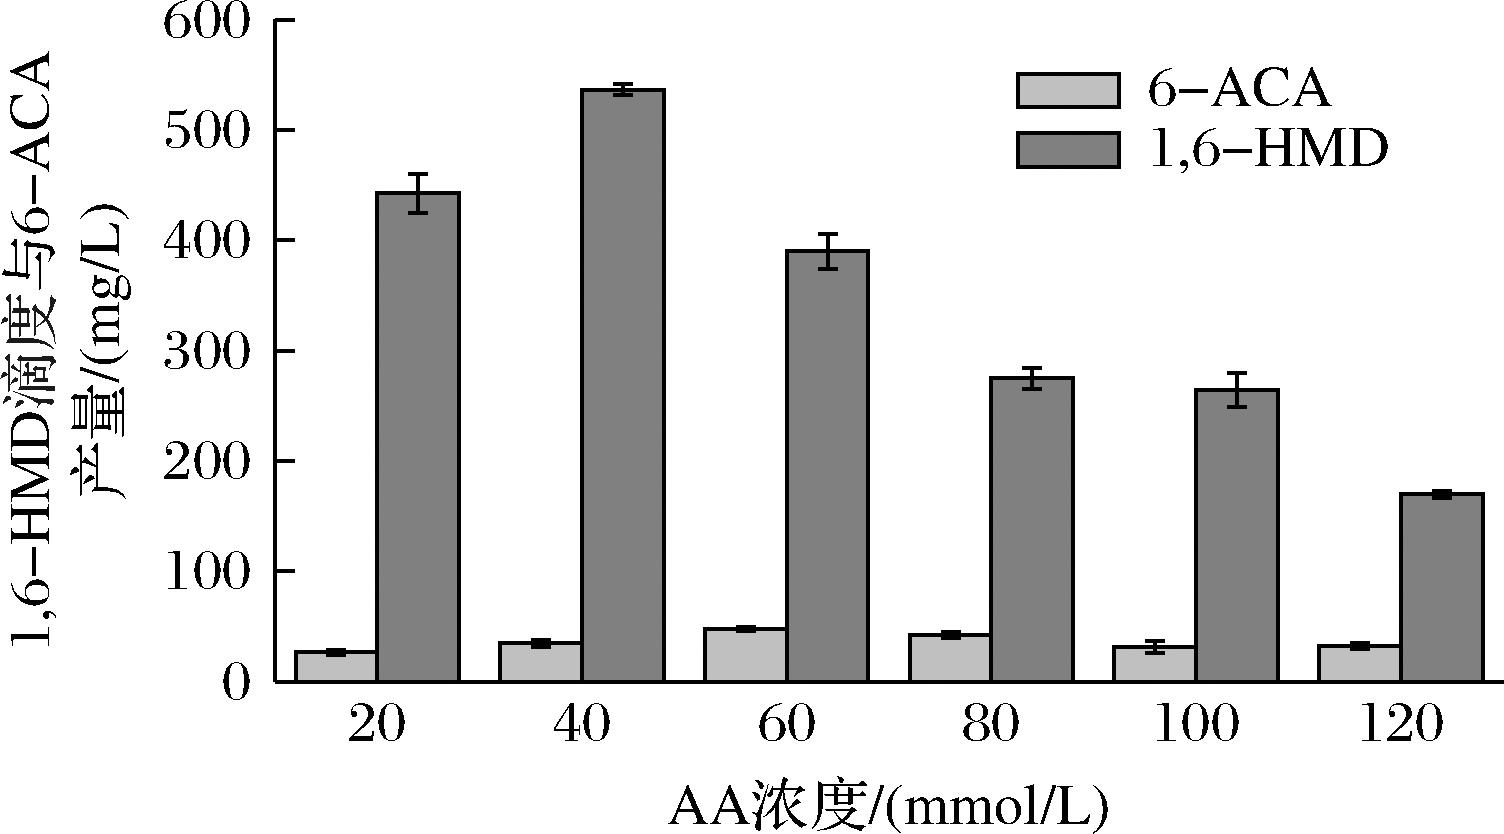
图6 AA底物浓度对1,6-HMD生成及6-ACA积累的影响
Fig.6 Effects of AA concentration on 1,6-HMD formation and 6-ACA accumulation
2.4 催化时间对反应过程的影响
反应时间对无细胞级联过程具有显著影响[23]。对1~12 h的反应过程进行监测发现,1,6-HMD随催化时间的延长持续升高,并在9 h时,达到最高值,为571.8 mg/L,随后在12 h时,略有下降。与此相对应,6-ACA在反应早期出现轻度积累,在3 h时,达到124.2 mg/L,随后随反应推进逐步降低,在9 h时,降至24.7 mg/L并在12 h时维持19.8 mg/L的低水平(图7)。上述结果表明,反应前期上游通量较快而下游消耗尚未完全匹配,导致6-ACA短暂积累。随着体系逐步建立稳定的通量传递,6-ACA被持续转化并驱动1,6-HMD积累。9 h之后1,6-HMD积累进入平台期并出现轻微回落,反映出底物逐步耗尽、酶活力衰减、副产物累积等因素对终点滴度的限制。因此,综合产物滴度与反应效率,本研究将9 h确定为该体系的适宜催化时间。
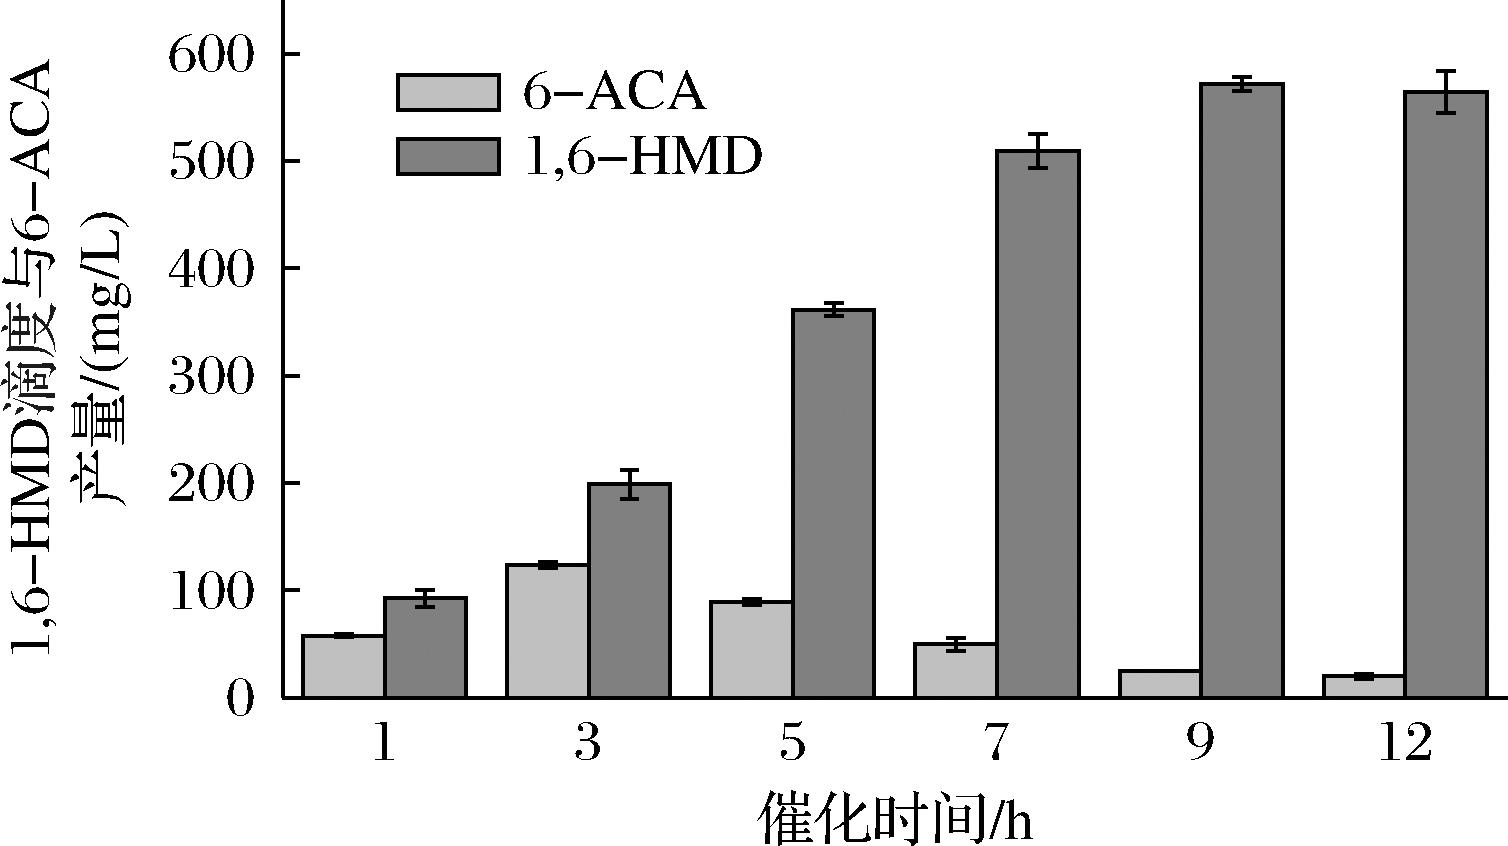
图7 催化时间对1,6-HMD产量的影响
Fig.7 Effects of catalytic time on the production of 1,6-HMD
为进一步评价该体系的催化性能,将本研究结果与已报道的以不同底物为原料合成1,6-HMD的生物催化研究进行了比较,结果如表2所示。已有研究主要利用L-赖氨酸、葡萄糖、AA和环己醇等底物,通过微生物发酵、全细胞催化或无细胞催化等方式进行1,6-HMD合成。与表2所列结果相比,本研究构建的AA无细胞催化体系在9 h时实现了571.8 mg/L的1,6-HMD积累,表明其具有较好的应用潜力。
表2 不同底物经生物催化合成1,6-HMD产量比较
Table 2 Comparison of 1,6-HMD titers produced by biocatalysis from different feedstocks
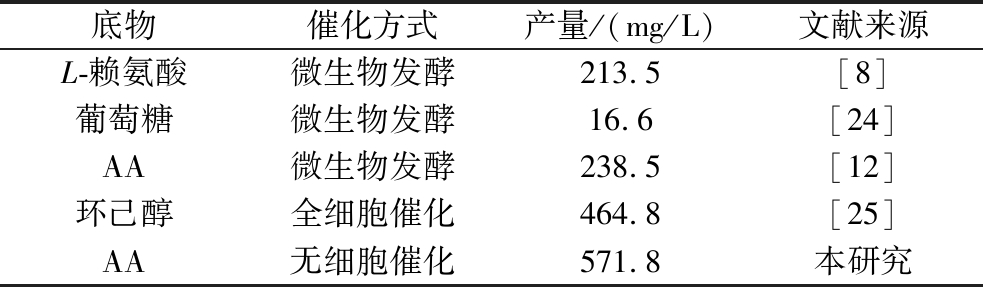
底物催化方式产量/(mg/L)文献来源L-赖氨酸微生物发酵213.5[8]葡萄糖微生物发酵16.6[24]AA微生物发酵238.5[12]环己醇全细胞催化464.8[25]AA无细胞催化571.8本研究
3 结论与讨论
本研究围绕AA到1,6-HMD的级联转化开展元件与体系构建:首先搭建由纯化酶组成的催化系统,1,6-HMD滴度为36.5 mg/L;随后引入无细胞催化系统进行验证与优化,6-ACA可被更有效地转化,1,6-HMD的积累显著提高至329.7 mg/L,为纯酶体系的9.0倍。该提升可能由于CAR以四聚体等寡聚体形式发挥活性作用,纯化过程使其构象稳定性下降,而无细胞体系的杂酶背景更有利于维持CAR催化功能;同时,体系内源代谢活性可能对无机磷酸、焦磷酸及转氨生成的酮酸等副产物起到一定消耗或缓冲作用,从而促进通量向终产物方向传递。
进一步开展过程强化,确定了关键参数的适宜范围。将ATP浓度设为60 mmol/L、NADPH浓度设为15 mmol/L,并将底物AA与氨基供体浓度分别控制在40 mmol/L与60 mmol/L时,1,6-HMD在9 h达到最高积累571.8 mg/L,为最初纯酶体系的15.7倍,对应1,6-HMD对AA的物质的量转化率为12.3%。上述结果为后续生物法生产1,6-HMD及无细胞系统生物催化提供了有益的参考与借鉴。
[1] 谢锐,徐保明,陈坤.己二胺合成工艺的研究进展[J].应用化工,2022,51(3):873-877;883.Xie R, Xu B, Chen K.Research progress on the synthesis of hexamethylenediamine[J].Applied Chemical Industry, 2022, 51(3):873-877;883.
[2] Hinzmann A, Betke T, Asano Y, et al.Synthetic processes toward nitriles without the use of cyanide:A biocatalytic concept based on dehydration of aldoximes in water[J].Chemistry-A European Journal,, 2021, 27(17):5313-5321.
[3] Betke T, Maier M, Gruber-Wölfler H, et al.Biocatalytic production of adiponitrile and related aliphatic linear α,ω-dinitriles[J].Nature Communications, 2018, 9:5112.
[4] Du L, Cao Z T, Wang X M, et al.Reaction kinetics and mechanism of adiponitrile preparation by adipic acid ammoniation[J].Chemical Engineering Science, 2024, 290:119851.
[5] Yu L, Wang J, Cao H G, et al.A review on catalyzed dimerization of acrylonitrile[J].Chinese Journal of Organic Chemistry, 2014, 34(10):1986.
[6] 冯赛平,程党国,陈丰秋,等.己二酸氨化制己二腈的宏观动力学[J].化工学报,2015,66(8):3057-3063.Feng S, Cheng D, Chen F, et al.Apparent kinetics of adipic acid ammoniation to adiponitrile[J].CIESC Journal, 2015, 66(8):3057-3063.
[7] Lee Y H, Lee S W, Kim H J, et al.Hydrogenation of adiponitrile to hexamethylenediamine over raney Ni and Co catalysts[J].Applied Sciences, 2020, 10(21):7506.
[8] Xiao K X, Wang D, Liu X M, et al.Novel bioproduction of 1,6-hexamethylenediamine from L-lysine based on an artificial one-carbon elongation cycle[J].ACS Omega, 2024, 9(39):40970-40979.
[9] Fedorchuk T P, Khusnutdinova A N, Evdokimova E, et al.One-pot biocatalytic transformation of adipic acid to 6-aminocaproic acid and 1,6-hexamethylenediamine using carboxylic acid reductases and transaminases[J].Journal of the American Chemical Society, 2020, 142(2):1038-1048.
[10] Strohmeier G A, Eiteljörg E I C, Schwarz A, et al.Enzymatic one-step reduction of carboxylates to aldehydes with cell-free regeneration of ATP and NADPH[J].Chemistry, 2019, 25(24):6119-6123.
[11] Goj D, Ebner S, Horvat M, et al.Cell-free reduction of carboxylic acids with secreted carboxylic acid reductase[J].Journal of Biotechnology, 2024, 382:44-50.
[12] Wang L, Li G H, Li A T, et al.Directed synthesis of biobased 1,6-diaminohexane from adipic acid by rational regulation of a functional enzyme cascade in Escherichia coli[J].ACS Sustainable Chemistry &Engineering, 2023, 11(15):6011-6020.
[13] Bowie J U, Sherkhanov S, Korman T P, et al.Synthetic biochemistry:The bio-inspired cell-free approach to commodity chemical production[J].Trends in Biotechnology, 2020, 38(7):766-778.
[14] Cai T, Sun H B, Qiao J, et al.Cell-free chemoenzymatic starch synthesis from carbon dioxide[J].Science, 2021, 373(6562):1523-1527.
[15] Tang S M, Liao D C, Li X W, et al.Cell-free biosynthesis system:Methodology and perspective of in vitro efficient platform for pyruvate biosynthesis and transformation[J].ACS Synthetic Biology, 2021, 10(10):2417-2433.
[16] Sauer U, Canonaco F, Heri S, et al.The soluble and membrane-bound transhydrogenases UdhA and PntAB have divergent functions in NADPH metabolism of Escherichia coli[J].Journal of Biological Chemistry, 2004, 279(8):6613-6619.
[17] Kim Y H, Kim H J, Shin J H, et al.Application of diethyl ethoxymethylenemalonate (DEEMM) derivatization for monitoring of lysine decarboxylase activity[J].Journal of Molecular Catalysis B: Enzymatic, 2015, 115:151-154.
[18] Xu S M, Song G, Qi X H, et al.Engineered interaction elements enable enhanced multi-enzyme assembly and cascade biocatalysis for indigo synthesis[J].Bioresource Technology, 2025, 429:132540.
[19] Dudley Q M, Anderson K C, Jewett M C.Cell-free mixing of Escherichia coli crude extracts to prototype and rationally engineer high-titer mevalonate synthesis[J].ACS Synthetic Biology, 2016, 5(12):1578-1588.
[20] Yewdall N A, André A A M, van Haren M H I, et al. ATP: Mg2+ shapes material properties of protein-RNA condensates and their partitioning of clients[J]. Biophysical Journal, 2022, 121(20):3962-3974.
[21] Li J M, Shi K, Li A T, et al.Development of a thermodynamically favorable multi-enzyme cascade reaction for efficient sustainable production of ω-amino fatty acids and α,ω-diamines[J].ChemSusChem, 2024, 17(6):e202400204.
[22] Abrahamson C H, Palmero B J, Kennedy N W, et al.Theoretical and practical aspects of multienzyme organization and encapsulation[J].Annual Review of Biophysics, 2023, 52:553-572.
[23] Siedentop R, Claaßen C, Rother D, et al.Getting the most out of enzyme cascades:strategies to optimize in vitro multi-enzymatic reactions[J].Catalysts, 2021, 11(10):1183.
[24] Qin N, Zhu F H, Liu Y M, et al.De novo production of 1,6-hexanediol and 1,6-hexamethylenediamine from glucose by metabolic engineered Escherichia coli[J].ACS Synthetic Biology, 2025, 14(2):598-608.
[25] Sarak S, Pagar A D, Khobragade T P, et al.A multienzyme biocatalytic cascade as a route towards the synthesis of α,ω-diamines from corresponding cycloalkanols[J].Green Chemistry, 2023,25(2):543-549.