5-羟基戊酸(5-hydroxyvaleric acid, 5-HV)是L-赖氨酸的重要衍生物[1-2],其在抗肿瘤类药物、抗结核类药物以及治疗糖尿病类药物等多种合成类药物的制备过程中可以作为碳骨架或增加药物的生物相容性。同时,5-HV也是一种重要的五碳平台化学品[3],用于聚氨酯、可生物降解聚酯制备和制药工业[4-7]。随着人们对可持续和环保材料需求的不断增加,5-HV作为生物基化学品的市场潜力正在增长。特别是在生物塑料和生物医药领域[8-10],5-HV的需求预计将持续上升。但受限于发酵水平的限制,目前国内外5-HV产品尚未形成工业级规模化的生产。
目前,5-HV主要通过以石油资源为原料的化学工业的方式合成,但是该方式并不利于能源和相关原料的可持续转化[11-12]。因此开发微生物细胞工厂资源,利用微生物从可再生原料中通过自身代谢合成大宗化学品,对于发展可持续性化学工业极为重要。从能源消耗和原材料可持续性供应等方面考虑,利用葡萄糖直接发酵生产5-HV具有较好的发展前景。
现有文献中,Choi等[13]通过引入L-谷氨酸氧化酶(glutamate oxidase, GOX)再生α-酮戊二酸(α-ketoglutaric acid, AKG),建立了双细胞生物转化体系。同时改造过氧化氢酶KatE,使其能抑制GOX反应中产生的H2O2对AKG的降解。通过筛选基因与载体的最佳组合并优化生物转化条件,显著提升了GOX的效能。在优化条件下,含GOX的5-HV途径产量较不含GOX时提升1.60倍,达到11.3 g/L的滴度。Chen等[14]利用大肠杆菌W3110的系统代谢工程技术,开发了5-HV微生物发生器,将L-赖氨酸盐酸盐转化为目标产物,摇瓶培养的5-HV产量为5.59 g/L,产率为0.96 mol/mol (5-HV/L-赖氨酸盐酸盐)。
L-赖氨酸是5-HV的重要前体物,菌株中L-赖氨酸的合成水平决定了5-HV的生产水平[15-17]。目前,在L-赖氨酸工业化生产领域中,广泛应用的发酵菌株大多数都是通过诱变育种后筛选营养缺陷型菌株或对诱变处理的菌株使用L-赖氨酸结构类似物筛选获得的[18-19]。虽然传统的诱变育种的方式可以得到过量生产L-赖氨酸的菌株,但诱变处理会对菌株的基因组造成未知的随机突变,且除了极少数的有益突变外,还伴随大量可能对菌株的生长和代谢过程产生未知影响的有害或中性突变。因此,需要建立荧光蛋白报告系统,使用流式细胞仪(fluorescence activated cell sorter, FACS)定向、高效地完成筛选。前期,本实验室通过人工构建含有L-赖氨酸稀有密码子AAA的荧光蛋白筛选标记质粒pET-22b-dx,建立菌株细胞内L-赖氨酸浓度与荧光强度之间的联系体系,间接反映5-HV的合成水平,为后续菌株的流式筛选提供了条件[20]。
实验室前期研究内容主要是向大肠杆菌BL21(DE3)中敲入L-赖氨酸α-氧化酶基因(raiP)、4-氨基丁酸转氨酶基因(gabT)、醇脱氢酶基因(yahK),并敲除琥珀酸半醛脱氢酶基因(gabD),打通大肠杆菌BL21(DE3)中5-HV合成代谢途径。在后续的菌株摇瓶发酵液中检测到3.25 g/L的戊二酸积累,为了减少这种副产物的积累,选择敲除gabD基因,在编码具有转运5-氨基戊酸能力的GabP蛋白的gabP基因的前面整合了一个Trc启动子,以增加gabP的表达量。最终得到菌株QluMG,5-HV合成水平为8.71 g/L。本研究以菌株QluMG为出发菌株,电转质粒pET-22b-dx至感受态细胞QluMG中,构建高通量筛选标记的重组菌DX-JN,建立5-HV产量与荧光强度体系之间的关系。通过紫外诱变和流式细胞分选相结合的方式,以荧光强度为依据筛选高产5-HV的工程菌株。
1 材料与方法
1.1 实验材料
1.1.1 菌株和质粒
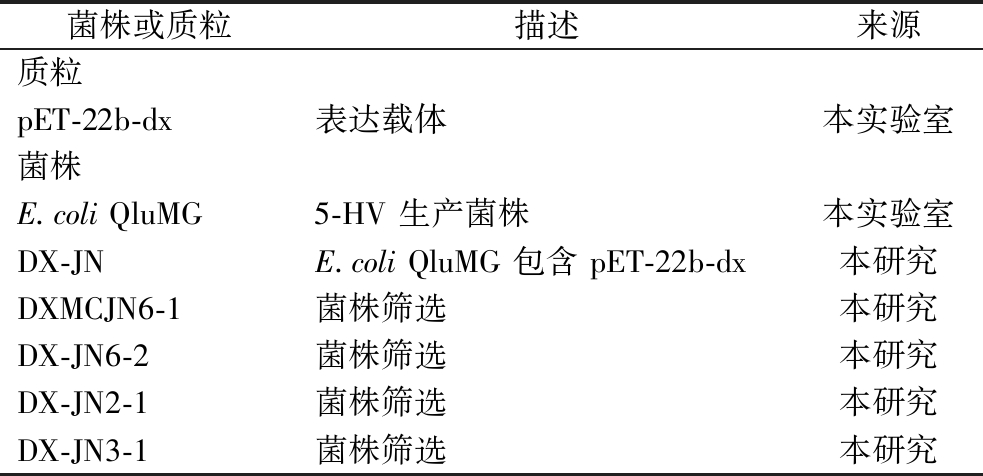
实验所用质粒pET-22b-dx及5-HV生产菌株E.coli QluMG均为实验室保存。菌株DX-JN、DXMCJN6-1、DX-JN6-2、DX-JN2-1、DX-JN3-1为本次实验构建或筛选,具体如表1所示。
表1 本研究中使用的菌株与质粒
Table 1 Strains and plasmids used in this study
菌株或质粒描述来源质粒pET-22b-dx表达载体本实验室菌株E.coli QluMG5-HV 生产菌株本实验室DX-JNE.coli QluMG 包含 pET-22b-dx本研究DXMCJN6-1菌株筛选本研究DX-JN6-2菌株筛选本研究DX-JN2-1菌株筛选本研究DX-JN3-1菌株筛选本研究
1.1.2 主要实验试剂
Fast Pure Gel DNA Extraction Mini Kit、Fast Pure Plasmid Mini Kit,南京诺唯赞生物科技股份有限公司;引物,上海生工生物工程股份有限公司;蛋白胨、酵母浸粉,北京奥博星生物技术公司;NaCl,国药集团化学试剂有限公司;琼脂粉,北京索莱宝科技有限公司;硫酸,烟台远东精细化工有限公司;50XTAE,北京酷莱博生物科技有限公司;绿如蓝溶液,北京天恩泽基因科技有限公司;氨苄,上海麦克林生化科技有限公司;5-羟基戊酸钠,北京乐妍科技股份有限公司;其他试剂如无特殊说明均为分析纯。
1.1.3 培养基
改良LB培养基:LB培养基中需另外添加丙酮酸,其终质量浓度为0.5 g/L。
1.1.4 主要仪器与设备
ZQYZ-CS恒温振荡培养箱,上海知楚仪器有限公司;AGT9601 PCR基因扩增仪,美国应用生物系统公司;DTUV2800可见分光光度计,上海巴玖实验有限公司;JY-SPCT DNA电泳仪,北京六一生物科技有限公司;MD2000H凝胶成像系统,英国UVItec公司;GC-1010型HPLC,日本岛津公司;Z326K高速离心机,德国Hemeus公司;VLBLATGD2酶标仪,赛默飞世尔科技公司。
1.2 实验方法
1.2.1 DX-JN菌株的构建
取100 μL冰上解冻的感受态细胞,与10 μL质粒DNA冰上混合,转移至预冷电转杯。使用2.5 kV、25 μF、200 Ω参数进行电击,立即加入1 mL改良LB培养基复苏1 h。取适量菌液涂布于含100 μg/mL氨苄青霉素的改良LB平板,37 ℃倒置培养12~16 h。挑取抗性平板上的单菌落,首先通过菌落PCR进行快速初筛,随后提取质粒DNA,通过DNA测序确认插入片段序列准确性,从而成功构建重组菌株DX-JN。
1.2.2 培养方法
以葡萄糖为底物,将突变菌分别接入含0.5 g/L丙酮酸的LB液体培养基中,37 ℃、200 r/min摇床中过夜培养12~16 h。随后将过夜培养的新鲜种子液按2%的接种量接种至含有100 mL含0.5 g/L丙酮酸的LB液体培养基的挡板三角瓶中。200 r/min的转速在37 ℃摇床上培养,培养至菌体光密度值约0.6时,加入底物葡萄糖进行30 ℃摇床发酵。发酵总时长84 h,每12 h取8 mL样品在-20 ℃冰箱中贮存备用。
1.2.3 分析方法
检测样品中的5-HV用紫外高效液相色谱仪。对粉碎好的样品进行10 000 r/min离心10 min并经0.22 μm的有机滤膜过滤置液相样品瓶中等待HPLC检测,测定重组菌诱导发酵后样品中5-HV的产量。通过紫外高效液相色谱仪检测,检测条件如下:流动相5 mmol/L H2SO4;体积流量0.6 mL/min;柱温65 ℃;检测波长210 nm。根据面积和浓度制作标准曲线,进而计算样品中5-HV的产量。
用去离子水将菌体稀释到合适的浓度,用LB液体培养基为样品对照,使用可见分光光度计测定600 nm下的菌液吸收值(OD600)。
1.3 数据分析
使用Excel对实验数据进行统计;使用Origin 2018C进行图像绘制。
2 结果与分析
2.1 蛋白荧光表达菌株DX-JN的构建
将宿主菌大肠杆菌QluMG按照标准电转感受态细胞制备流程处理,制备成高效电转感受态细胞。随后,通过电穿孔转化法将质粒pET-22b-dx导入至QluMG感受态细胞中。电转完成后,将转化体系在适宜条件下复苏培养3 h,随后涂布于LB固体培养基,并于37 ℃条件下进行过夜培养。
培养结束后,从平板中挑取若干单菌落,通过PCR对其进行质粒整合鉴定,鉴定结果如图1所示。PCR扩增条带清晰,与预期大小一致,证实质粒pET-22b-dx已成功转入宿主菌QluMG中。由此,成功构建了含有目标质粒的工程菌株DX-JN。
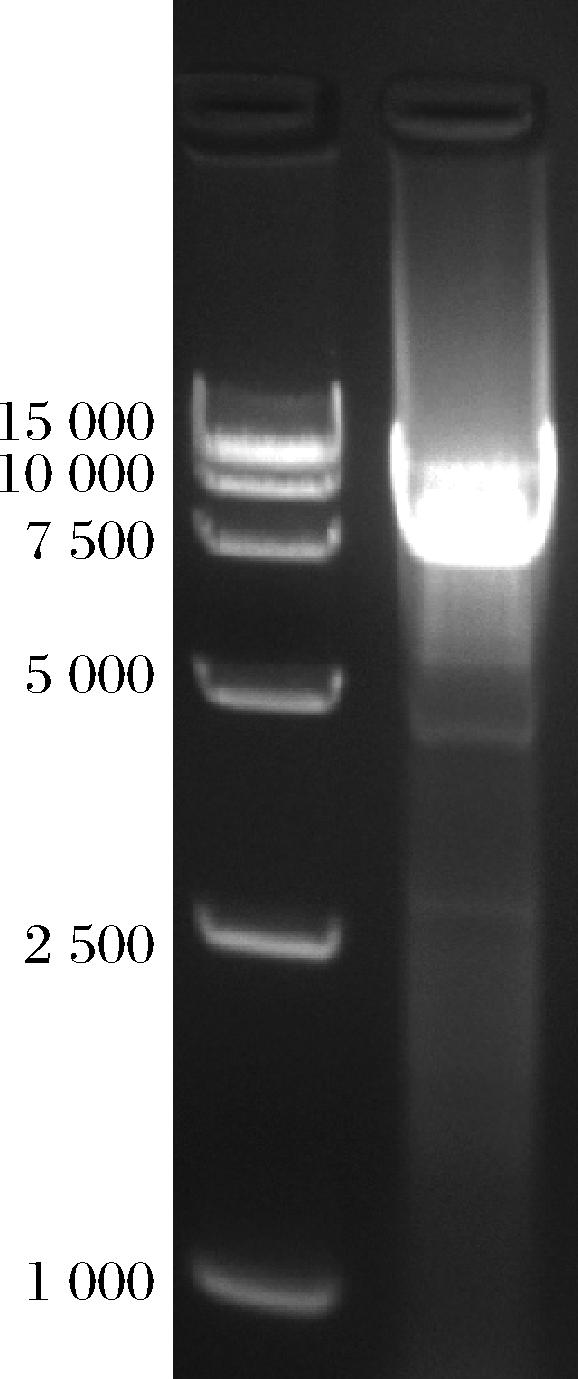
图1 工程菌DX-JN质粒pET-22b-dx的PCR验证
Fig.1 PCR verification of plasmid pET-22b-dx in engineered strain DX-JN
2.2 工程菌DX-JN的紫外诱变
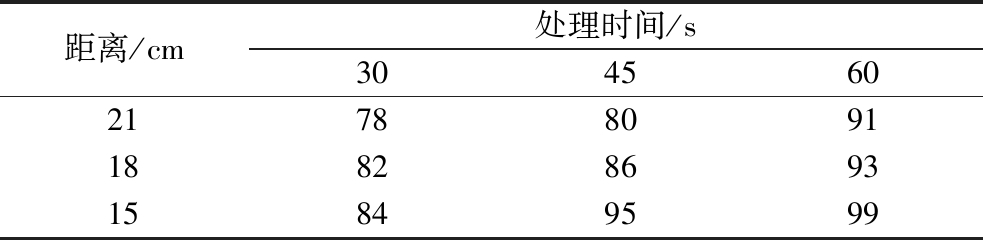
用生理盐水将扩增菌液稀释成10-8浓度,得到稀释菌液,稀释菌液导入一次性无菌培养皿中,反复转动,使稀释菌液平铺在培养皿中,确保紫外灯可以对培养皿中的稀释菌液平均照射。在超净台中避光操作,使用36 W紫外灯管进行照射,得到紫外诱变菌液。为评估不同紫外照射时间和距离对稀释菌液的影响,设置4个时间梯度:0 s(对照组),以及30、45、60 s。设置3个距离梯度:21、18、15 cm。将紫外诱变处理后的菌液涂布在LB培养基平板上,在37 ℃培养箱中倒置并避光过夜培养,待菌落长出后对菌落进行计数,计算致死率。实验结果显示18 cm、45 s时效果最好,如表2所示。
表2 紫外线照射距离与时间对致死率的影响 单位:%
Table 2 Effects of UV exposure distance and duration on mortality rate
距离/cm处理时间/s304560217880911882869315849599
2.3 工程菌DX-JN的流式荧光分选
在致死率为85%~90%的平板中挑取8个单菌落,并对这8个单菌落进行流式细胞仪上机前处理。上机前处理主要包括:经过紫外诱变生长出的菌落进行挑点转移至LB液体培养基中,待菌液OD600达到0.6~0.8时,将其作为种子液进行转接,其生长条件为37 ℃、200 r/min。将培养好的种子液按照2%的接种量接种于50 mL LB液体培养基中进行培养,待菌体生长至OD600值为0.6左右时,加入终浓度为0.02 mmol/L的 IPTG,发酵24 h后加入双氧水与乙醇,IPTG诱导48 h,然后将发酵培养液以4 000 r/min的条件,离心处理10 min,弃去上清液。使用生理盐水将菌体重悬冲洗并重复离心2~3次,再使用生理盐水重悬,保证菌液状态清澈并且微透明,此时可以用作流式筛选。
流式细胞仪分选单个细胞直接分选在96浅孔板中,其中96浅孔板中已加好LB培养基,将分选好的96浅孔板置于37 ℃的摇床中培养至菌液浑浊。在96浅孔板中取出100 μL已浑浊的菌液,并将其接种至96深孔板中进行发酵培养,96深孔板中已加好900 μL LB培养基,此LB培养基中含有0.02 mmol/L IPTG,用于对菌液进行诱导表达。接种后的深孔板在37 ℃条件下发酵培养48~72 h,发酵完成后,从每孔中取出200 μL诱导表达后的菌液,并将其转移到黑色96孔板中,使用酶标仪在488 nm下检测荧光强度。通过分析发射光的强度,可以从黑色96孔板中筛选出荧光强度高的突变菌株。
图2为流式细胞仪的突变菌荧光强度对比,可以看出突变菌DX-JN2、DX-JN3、DX-JN6荧光强度高于对照菌DX-JN,将这3株荧光强的突变菌,分选到含LB培养基的96孔板上,于37 ℃、200 r/min的摇床中培养。流式筛选获得8个突变菌株,在96孔板上对分选的突变菌进行孔板发酵验证,经过验证发现突变菌DXMCJN6-1、DX-JN6-2、DX-JN2-1、DX-JN3-1荧光强度明显高于对照菌,如图3所示。
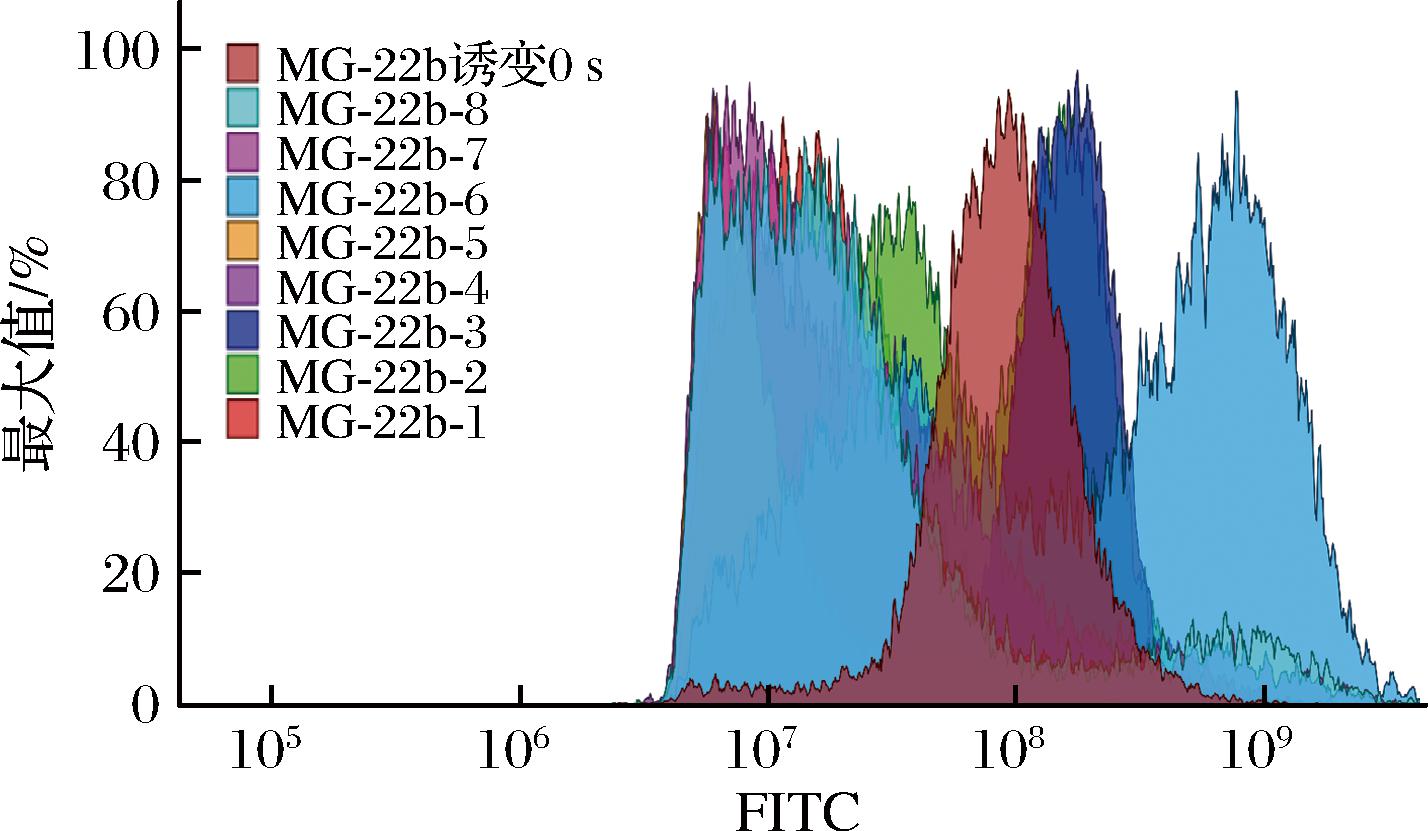
图2 流式细胞仪上突变菌荧光强度对比
Fig.2 Comparison of fluorescence intensity among mutant strains by flow cytometry
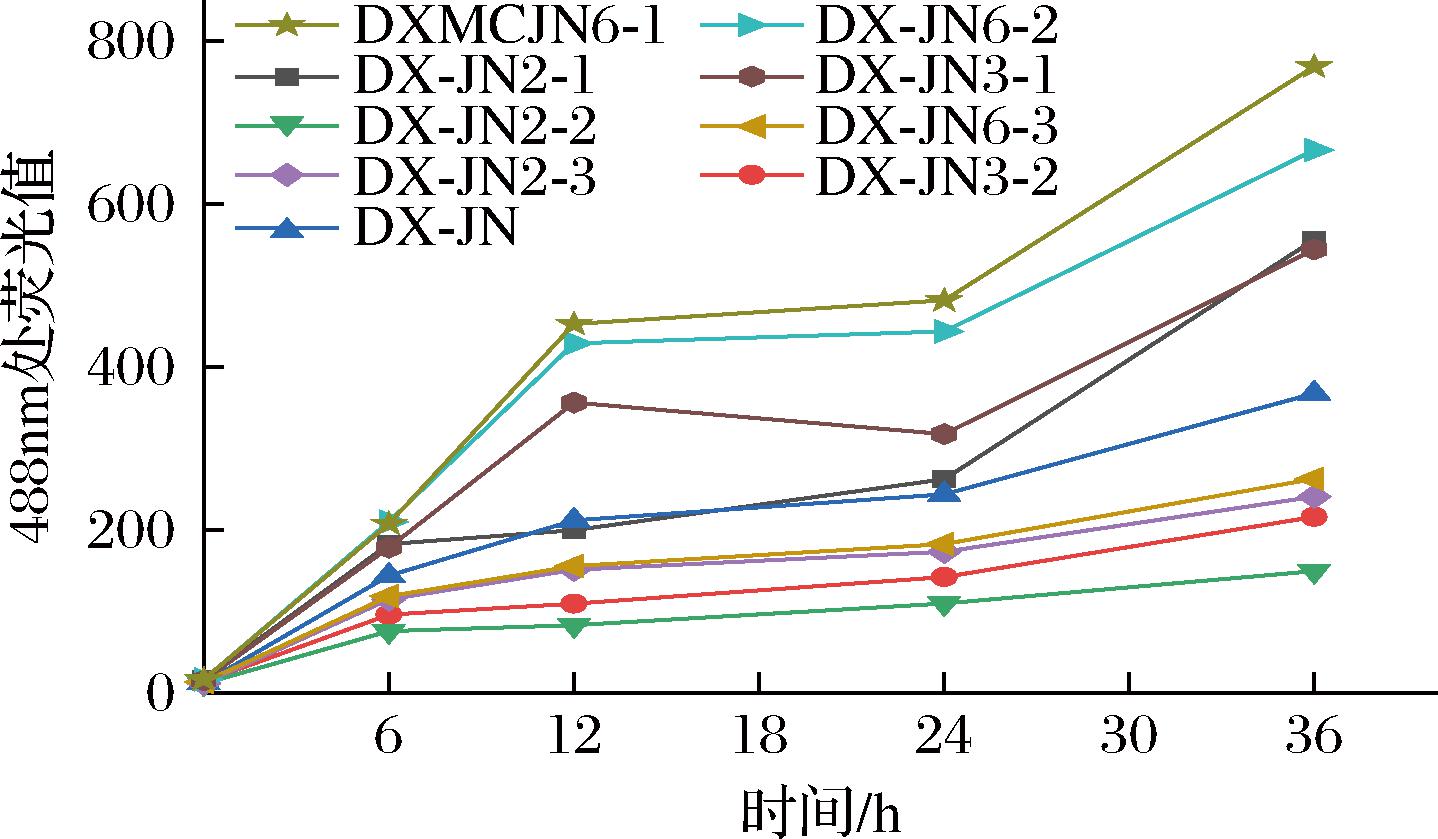
图3 九十六孔板中突变菌荧光强度对比
Fig.3 Comparison of fluorescence intensity among mutant strains in 96-well plate
2.4 工程菌DX-JN培养基的初始葡萄糖浓度优化
适宜的底物浓度是决定菌体工业发酵性能的关键因素之一。为精确优化工程菌株DX-JN的葡萄糖底物浓度,首先系统考察了其在不同初始葡萄糖质量浓度0~20 g/L下的生长动力学。将活化后的DX-JN以2%(体积分数)的接种量转接至96孔深孔板中,于37 ℃条件下振荡培养,并利用酶标仪定时测定600 nm下的光密度(OD600)以监控菌体生长。
如图4所示,当葡萄糖质量浓度处于较低水平0~10 g/L时,菌株DX-JN表现出优异的生长性能,其比生长速率较高,延滞期短。而当初始葡萄糖浓度提升至20 g/L时,菌株DX-JN受到显著的生长抑制,具体表征为延滞期明显延长,且最终的最大生物量显著降低。推测这一现象产生的原因是高浓度葡萄糖所引发的底物抑制作用,以及由此带来的巨大的代谢负荷。过高的底物浓度可能扰乱了细胞的正常代谢网络,导致关键中间产物积累或能荷失衡,从而抑制了菌体的生长与增殖。
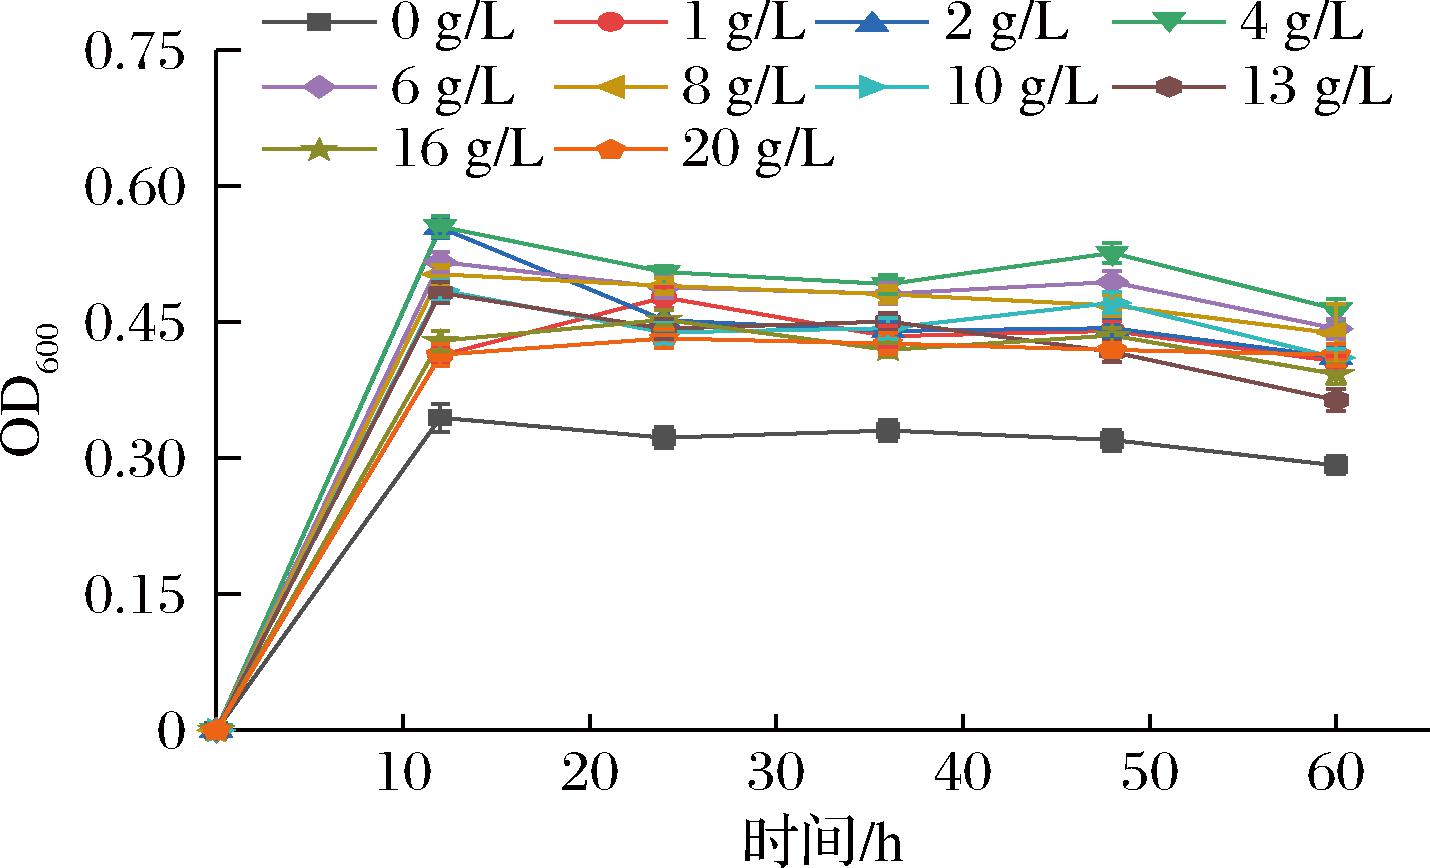
图4 不同葡萄糖浓度对DX-JN菌体浓度的影响
Fig.4 Effects of different glucose concentrations on cell density of DX-JN
上述葡萄糖底物浓度优化实验的结果表明,在发酵过程中控制初始葡萄糖的浓度、避免过高底物胁迫,是维持菌体代谢活力的关键。基于此,对发酵策略进行了优化,最终选择10 g/L作为摇瓶发酵的初始葡萄糖质量浓度。该浓度的葡萄糖既能够为菌体生长与5-HV的合成提供持续且充足的碳源,又能够有效避免过高葡萄糖浓度所引发的抑制效应,将代谢负荷控制在较低水平。适宜的发酵底物浓度可以在保障菌体优良生理状态的同时,为5-HV的高效合成创造有利条件。
2.5 以葡萄糖为底物生物合成5-HV
挑选荧光强度高的菌株DXMCJN6-1、DX-JN6-2、DX-JN2-1、DX-JN3-1与对照菌DX-JN,分别接种至LB培养基中37 ℃摇床活化,待OD600为2时,接种1%新鲜种子液至LB培养基中进行摇床培养,OD600值为1时,加入10 g/L的底物葡萄糖,30 ℃摇床发酵并定时取样检测菌体浓度与葡萄糖浓度,底物葡萄糖浓度过低时加葡萄糖。摇瓶结果显示突变菌DXMCJN6-1在消耗30 g/L葡萄糖时,最终可生成15.99 g/L 的5-HV,葡萄糖转化率达到53.3%。对照菌DX-JN合成5-HV产量为8.71 g/L,葡萄糖转化率为29%。筛选后突变菌DXMCJN6-1的5-HV产量有了大幅度提升(图5)。
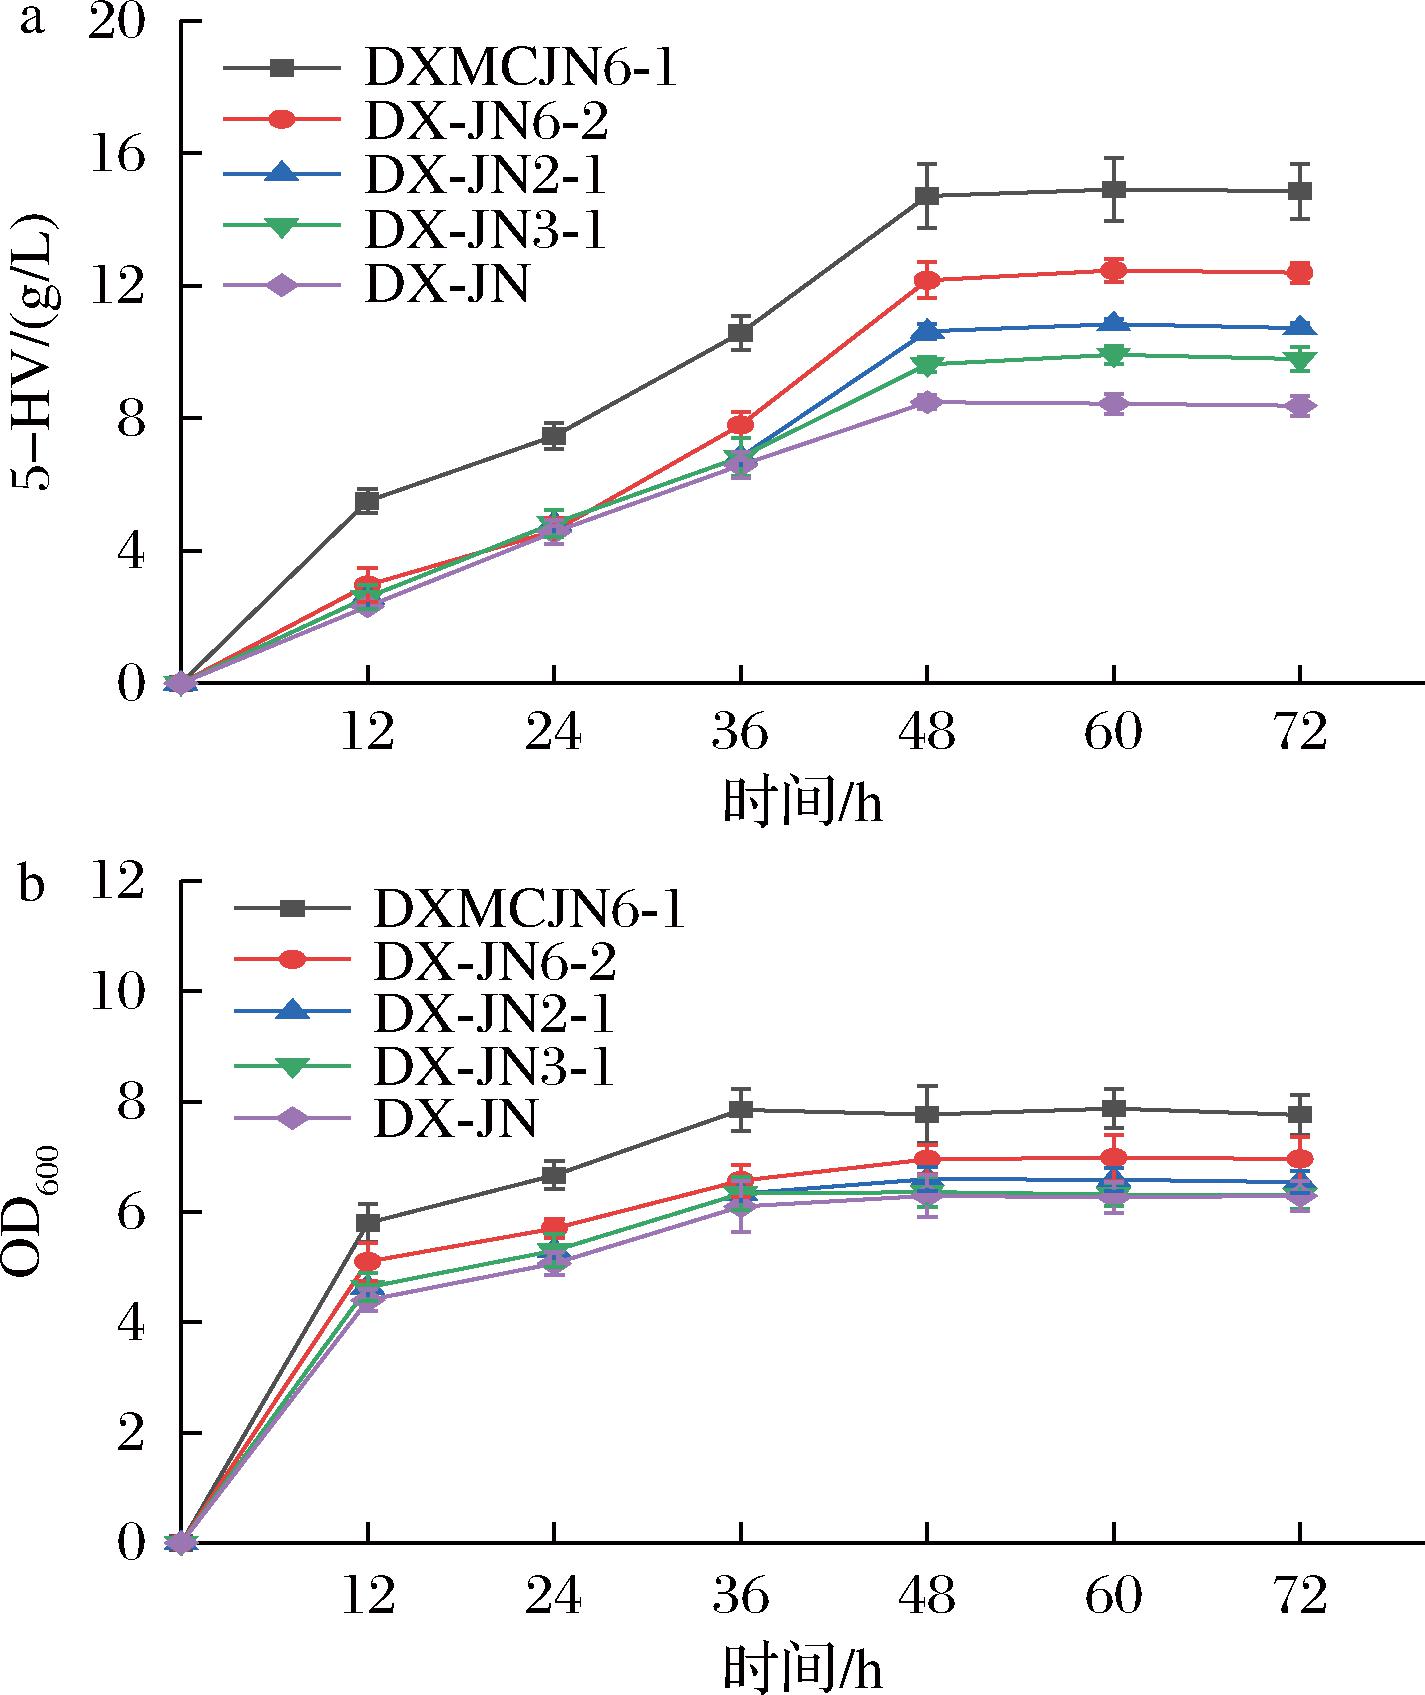
a-5-HV产量;b-菌体浓度
图5 筛选所得菌株5-HV产量和菌体浓度的对比
Fig.5 Comparison of 5-HV production and biomass concentration of the screened strains
3 结论
在前期的研究中,5-HV大多数情况下是作为一种副产物或代谢中间体被报道,尤其是在微生物代谢合成戊二酸、己二酸等二羧酸的途径中常被检测到有5-HV的合成,但以5-HV为目标产物的系统性研究相对较少[8]。近年来,随着5-HV在生物可降解聚合物、医药中间体及高性能材料前体等领域的应用潜力不断被发现,应用范围逐渐扩展。生物法合成5-HV受到越来越多学者的关注。然而,直接利用微生物通过自身代谢高效合成5-HV仍然面临着诸多挑战,例如细胞内缺乏天然的高产途径、前体供应不平衡以及缺乏高效筛选方法等,这些因素限制了5-HV代谢合成产量和转化率的提升,也延缓了其产业化生产的进程。
本实验通过电转的方式将质粒pET-22b-dx电转至感受态细胞QluMG中,构建具有高通量筛选标记的重组菌DX-JN,建立5-HV代谢合成产量与荧光强度体系之间的对应关系。经过紫外诱变和流式细胞分选相结合的方式,根据菌株所表现出的荧光强度筛选出高产5-HV的工程菌株。由此方法获得一株高产5-HV的大肠杆菌DXMCJN6-1,当葡萄糖的消耗量为30 g/L时,摇瓶发酵最终可生成15.99 g/L的5-HV,其对应的葡萄糖转化率为53.3%。同时,对照菌DX-JN合成5-HV产量为8.71 g/L,葡萄糖转化率为29%。
本研究以5-HV为目标产物,通过理性代谢工程与高通量筛选策略相结合的方式,成功构建了基于荧光报告系统的快速育种平台。利用紫外诱变与流式细胞分选,实现了对5-HV高产菌株的高效挖掘,最终获得了一株高产5-HV的突变株DXMCJN6-1。该菌株的摇瓶发酵水平相较对照菌显著提升,葡萄糖转化率提高近一倍。这一成果不仅证明了该筛选体系的可靠性与高效性,也为生物法合成5-HV的产业化提供了可行的菌株改造与筛选思路。工业微生物在发酵过程中通常以提供高浓度的底物葡萄糖来提升产物滴度,但由此引发的渗透压胁迫和代谢副产物积累严重限制了生产效率。尽管代谢工程手段可以优化菌株的代谢途径,但底物耐受性仍是很多工程菌微生物产业化放大的瓶颈问题。适应性实验室进化作为一种非理性策略,已被广泛应用于增强菌株环境适应性,后期可以对5-HV的突变株DXMCJN6-1进行高浓度葡萄糖梯度驯化,进一步优化葡萄糖底物浓度,获得耐受性提升的突变株。在此基础上,通过30 L小型发酵罐进行上罐发酵,优化转速、溶氧、碳氮比、底物添加量、发酵温度、分批补料发酵等指标,探究生物合成5-HV重组菌最适发酵条件,也是进一步提高葡萄糖转化5-HV能力可选的解决方案。
[1] Yang F W, Wang H, Zhao C, et al.Metabolic engineering of Halomonas bluephagenesis for production of five carbon molecular chemicals derived from L-lysine[J].Metabolic Engineering, 2024, 81:227-237.
[2] Wang J L, Yan X, Zheng S, et al.Biosynthesis of poly (δ-valerolactone) (PVL) by Halomonas bluephagenesis[J].Chemical Engineering Journal, 2025, 519:165410.
[3] Wang G D, Wang Y W, Wu Y S, et al.Metabolic engineering of Escherichia coli for de novo production of 5-hydroxyvalerate via L-lysine α-oxidase pathway[J].Bioresource Technology, 2024, 412:131359.
[4] Oh S J, Kim S, Lee Y, et al.Controlled production of a polyhydroxyalkanoate (PHA) tetramer containing different mole fraction of 3-hydroxybutyrate (3-HB), 3-hydroxyvalerate (3-HV), 4-HV and 5-HV units by engineered Cupriavidus necator[J].International Journal of Biological Macromolecules, 2024, 266(2):131332.
[5] Sohn Y J, Kang M, Baritugo K A, et al.Fermentative high-level production of 5-hydroxyvaleric acid by metabolically engineered Corynebacterium glutamicum[J].ACS Sustainable Chemistry &Engineering, 2021, 9(6):2523-2533.
[6] Chuahj A, Yamada M, Taguchi S, et al.Biosynthesis and characterization of polyhydroxyalkanoate containing 5-hydroxyvalerate units:effects of 5-HV units on biodegradability, cytotoxicity, mechanical and thermal properties[J].Polymer Degradation and Stability, 2013, 98(1):331-338.
[7] Lakshmanan M, Foong C P, Abe H, et al.Biosynthesis and characterization of co and ter-polyesters of polyhydroxyalkanoates containing high monomeric fractions of 4-hydroxybutyrate and 5-hydroxyvalerate via a novel PHA synthase[J].Polymer Degradation and Stability, 2019, 163:122-135.
[8] Cen X C, Liu Y, Chen B, et al.Metabolic engineering of Escherichia coli for de novo production of 1, 5-pentanediol from glucose[J].ACS Synthetic Biology, 2021, 10(1):192-203.
[9] Li Z B, Yang J, Loh X J.Polyhydroxyalkanoates:opening doors for a sustainable future[J].NPG Asia Materials, 2016, 8(4):e265-e265.
[10] López N I, Pettinari M J, Nikel P I, et al.Polyhydroxyalkanoates:much more than biodegradable plastics[J].Advances in Applied Microbiology, 2015, 93:73-106.
[11] Chen Y H, Song W Z, Wang G D, et al.Metabolic engineering of high L-lysine-producing Escherichia coli for de novo production of L-lysine-derived compounds[J].ACS Synthetic Biology, 2024, 13(9):2948-2959.
[12] Kim B, Oh S J, Hang J H, et al.Complementation of reducing power for 5-hydroxyvaleric acid and 1, 5-pentanediol production via glucose dehydrogenase in Escherichia coli whole-cell system[J].Enzyme and Microbial Technology, 2023, 170:110305.
[13] Choi S, Kim B, Kim S, et al.Establishment of efficient 5-hydroxyvaleric acid production system by regenerating alpha-ketoglutaric acid and its application in poly (5-hydroxyvaleric acid) production[J].Journal of Biotechnology, 2024, 387:12-22.
[14] Chen C, Wang T T, Ye P, et al.Metabolic engineering of Escherichia coli for the efficient production of 5-hydroxyvaleric acid[J].Process Biochemistry, 2023, 130:625-633.
[15] Wu Z J, Chen T P, Sun W J, et al.Optimizing Escherichia coli strains and fermentation processes for enhanced L-lysine production:A review[J].Frontiers in Microbiology, 2024, 15:1485624.
[16] Ye C, Luo Q L, Guo L, et al.Improving lysine production through construction of an Escherichia coli enzyme-constrained model[J].Biotechnology and Bioengineering, 2020, 117(11):3533-3544.
[17] Sohn Y J, Kim H T, Kang M, et al.Metabolic engineering of Corynebacterium glutamicum for highly selective production of 5-hydroxyvaleric acid[J].Metabolic Engineering, 2025, 90:33-42.
[18] Zhang L, Cheng Z J, Jiang J, et al.Screening of high glucose tolerant Escherichia coli for L-valine fermentation by autonomous evolutionary mutation[J].Applied Microbiology and Biotechnology, 2025, 109(1):15.
[19] Li N, Lu J, Wang Z R, et al.Improving the regeneration rate of deep lethal mutant protoplasts by fusion to promote efficient L-lysine fermentation[J].BMC Biotechnology, 2023, 23(1):22.
[20] Fang K, Ma J, Wang X Y, et al.Flow-cytometric cell sorting coupled with UV mutagenesis for improving pectin lyase expression[J].Frontiers in Bioengineering and Biotechnology, 2023, 11:1251342.