在生牛乳冷链储运过程中,低温环境虽能抑制大部分微生物的生长,但耐冷或嗜冷微生物仍会持续繁殖,并成为优势菌群[1]。这些耐冷菌分泌蛋白酶、脂肪酶等酶类,会分别分解乳中的蛋白质和脂肪,前者产生带有苦味的氨基酸和多种小分子肽,后者引发脂类氧化,最终导致牛奶出现色泽改变、絮凝等现象[2-3]。在冷藏生牛乳中,假单胞菌属(Pseudomonas)是常见的耐冷菌类群,其分泌的金属蛋白酶能降解酪蛋白,导致乳蛋白胶束结构破坏、zeta电位降低及多肽释放,从而引发质构和风味劣变[4]。此外,一些具有耐热性的蛋白酶在高温灭菌后仍可能残留活性,给后续乳制品的货架期稳定性带来潜在风险[5-7],尤其是对于长货架期的常温牛奶等类别的产品。因此,仅识别生牛乳中是否存在假单胞菌,或仅检测菌落总数和耐冷菌菌落总数,均已不足以支持有效的风险管控,必须进一步明确分离株的表型特征及其具备的腐败风险,为实现分级精准防控提供科学依据。
分型鉴定技术是解析微生物遗传多样性、揭示菌株遗传特征与表型的核心手段,近年来在食源性腐败菌和致病菌研究中得到广泛应用。目前,将分型结果与菌株表型进行关联分析,正逐渐成为该领域的研究热点,例如,Aguilera等[8]通过全基因组测序技术解析了假单胞菌的关键遗传特征,并将其与决定乳品腐败风险的核心表型之一—碱性金属蛋白酶AprX的活性及热稳定性建立联系。Huang等[9]采用全基因组测序技术对蜡样芽胞杆菌生物被膜形成相关基因和毒素形成相关基因进行分析,揭示了该菌群在遗传特征与表型层面的高度多样性及复杂性。此外,本实验室前期成功地将基质辅助激光解析电离飞行时间质谱技术与假单胞菌生物被膜形成能力建立了直接、可预测的联系[10]。这些研究均表明,分型鉴定技术能够突破传统表型检测的局限性,揭示污染菌的风险特征,是当前乳品微生物防控研究的重要发展趋势。然而,目前关于生牛乳中假单胞菌的总蛋白酶水解特征相关的分子分型研究还相对不足。因此,如何通过一套兼具速度快、分辨率高、准确性高及与蛋白水解表型聚类一致性高的分子分型方法,从复杂样本中准确锁定具有强蛋白水解能力的高致腐风险菌株,仍是当前乳业在质量风险识别与溯源方面亟待解决的实际问题。
常用的分子分型方法因其原理与分辨力不同,在微生物鉴定与表型关联研究中各有侧重。16S rRNA基因序列的分析,适用于物种特异性检测或更广泛分类群的鉴定[11]。该技术通常能够准确鉴定至属水平,可用于大规模样本中假单胞菌属的初步筛选[5]。核糖体分型可通过酶切后形成的特异性指纹图谱来反映菌株间的遗传差异[12]。同时,该技术可依托全自动分析系统(如Riboprinter®)实现标准化检测,可显著提升分析效率[13-14]。在核糖体分型中,与PvuⅡ酶(Proteus vulgaris type Ⅱ restriction endonuclease,PvuⅡ)和Hind Ⅲ酶(Haemophilus influenzae DNA endonuclease Ⅲ,Hind Ⅲ)相比,EcoR I酶(Escherichia coli restriction endonuclease I,EcoR I)的核糖体蛋白水解效果更佳,可产生更丰富的条带图谱,从而提供更高的分辨能力[15]。Wiedmann等[16]的研究证实了核糖体分型技术在假单胞菌鉴定中具有良好的适用性。Dogen等[17]曾发现同核糖体型菌株的蛋白水解能力趋于一致,但其研究仅考察了定性的蛋白水解能力,尚未基于定量酶活力数据构建一套完整的腐败风险等级划分体系。类多位点序列分型(multi-locus sequence typing-like typing,MLST-like)是一种基于多位点序列的分子分型方法,但不完全遵循多位点序列分型(multilocus sequence typing,MLST)标准化方案的微生物分子分型策略,属于广义MLST衍生方法[18]。该方法具有较高的分辨力和可重复性,能够弥补单一基因分型分辨率不足的缺陷,也为解析菌株基因型与腐败相关表型的对应关系提供了新的技术思路。因此,在处理大规模样本的分型鉴定需求时,以上3种分子分型方法不失为高效省时的分型鉴定手段。然而关于这3种分子分型方法与假单胞菌蛋白水解特征相关性的研究还鲜有报道。
基于此,本研究以31株假单胞菌(26株源自上海地区生牛乳的假单胞菌分离株及5株假单胞菌标准菌株)为研究对象,通过探究菌株的蛋白水解特性,结合16S rRNA基因序列分析技术、核糖体分型技术和MLST-like分型技术开展菌株分型,旨在通过探讨以上3种分型方法与表型聚类一致性分析中的适用性,进一步明确生牛乳中假单胞菌的表型特征与分子分型聚类之间的对应关系,以期为生牛乳中假单胞菌带来的蛋白水解的风险分析及由其导致的乳制品腐败的风险防控提供理论依据。
1 材料与方法
1.1 材料与试剂
26株假单胞菌,光明乳业研究院菌种保藏库;门多萨假单胞菌(Pseudomonas mendocina)CICC21629、荧光假单胞菌(Pseudomonas fluorescens)CICC23246、荧光假单胞菌(Pseudomonas fluorescens)CICC23250、荧光假单胞菌(Pseudomonas fluorescens)CICC23251,中国工业微生物菌种保藏管理中心;施氏假单胞菌(Pseudomonas stutzeri)IQCC12612,中国检验检疫微生物菌种保藏管理中心。
脱脂乳粉,新西兰恒天然公司;平板计数琼脂(plate count agar,PCA)、胰蛋白大豆肉汤(tryptic soy broth,TSB),美国BD公司;超高温瞬时灭菌(ultra-high temperature treated,UHT)乳,市售;PBS,上海阿拉丁生化科技有限公司;偶氮酪蛋白,美国Sigma-Aldrich公司;三氯乙酸(trichloroacetic acid,TCA),国药集团化学试剂有限公司;Ezup柱式细菌基因组DNA抽提试剂盒、SanPrep柱式DNA胶回收试剂盒、Taq Plus DNA聚合酶,上海生工生物工程股份有限公司; RiboPrinter试剂盒,美国Hygiena公司;DNeasy UltraClean 微生物DNA提取试剂盒,凯杰企业管理(上海)有限公司;MGIEasy Fast酶切文库制备试剂套装、DNBSEQ一步法DNB制备试剂盒、DNBSEQ-G99RS 高通量测序试剂套装,深圳华大智造科技股份有限公司;GeneRuler DNA Ladder Mix、Qubit ssDNA 检测试剂盒、Qubit dsDNA HS 检测试剂盒,赛默飞世尔科技公司。
1.2 仪器与设备
BPH-9082精密恒温培养箱,上海一恒科学仪器有限公司;高压蒸汽灭菌锅,日本三洋公司;5424R高速离心机,美国Eppendorf公司;WNB45L4恒温水浴锅:德国Memmert公司;Spectra M5酶标仪,Molecular Devices公司;全自动微生物基因指纹鉴定系统,美国DuPont公司;PCR-96 PCR反应扩增仪,BBI公司;DYY-6C 电泳仪,北京六一生物科技有限公司;FR980 凝胶成像系统,上海复日科技有限公司;3730XL 测序仪,美国应用生物系统公司;DNBSEQ-G99基因测序仪,深圳华大智造科技股份有限公司;4150 TapeStation自动化电泳系统,安捷伦科技有限公司;Invitrogen Qubit 4荧光计、ProFlexTM PCR系统,赛默飞世尔科技公司。
1.3 试验方法
1.3.1 菌株复苏
取出-80 ℃冰箱中保藏的菌种,用无菌接种环取一环菌液划线于PCA培养基上,放入27 ℃培养箱中培养24 h,接种环挑取平板上长出的单菌落划线于PCA培养基上,继续分离纯化,直至长出形态大小相似的单菌落。
1.3.2 菌悬液制备
无菌接种环挑取分离划线的单菌落,接种至TSB中过夜培养,制备成菌悬液。菌悬液经13 500×g离心,将细菌沉淀用PBS重悬,菌悬液浓度在108~109 CFU/mL。
1.3.3 假单胞菌蛋白水解能力测定与蛋白水解致腐风险分级
1.3.3.1 脱脂乳琼脂平板定性试验与蛋白水解能力阳性和阴性的判别
参考Narvhus等[19]的试验方法稍作修改。2%(质量分数)脱脂乳琼脂平板配制:称取4 g脱脂乳粉,4.7 g PCA于锥形瓶中加入蒸馏水至200 mL,混匀后115 ℃灭菌10 min,倒平板备用。菌液接种:将待测菌液的密度调整至OD600=0.4,并取20 μL菌液接种至2%脱脂乳琼脂平板上的预留痕孔中(直径为8 mm,经无菌打孔器打孔),27 ℃培养2 d,每株菌设定3个重复,通过观察孔周围是否出现水解圈以评估其蛋白水解能力。利用卡尺测量水解圈在垂直交叉2个方向的直径,最终取3次测量结果的平均值作为该菌株的水解圈直径。
蛋白水解能力阳性和阴性的判别:根据上述脱脂乳琼脂平板试验测得的蛋白水解圈直径为依据,直径为0 mm的判断为蛋白水解能力阴性(■),直径>0 mm的判断为蛋白水解能力阳性(■)。
1.3.3.2 偶氮酪蛋白法定量测定试验与蛋白水解致腐风险分级
参考Yuan等[20]的试验方法稍作修改。菌液接种:取100 μL菌悬液加入到10 mL UHT乳中27 ℃培养;用100 μL无菌PBS代替菌悬液,为空白对照。溶液配制:使用无菌PBS配制1.5%(质量分数)偶氮酪蛋白溶液,静置1~2 d,备用。配制20%(质量分数)TCA溶液,备用。偶氮酪蛋白测定:样品离心后取上清液,将100 μL无细胞上清液与500 μL PBS混合于1.5 mL离心管中,然后加入100 μL 1.5%偶氮酪蛋白溶液,振荡混匀,37 ℃下孵育1 h,加入500 μL 20%TCA溶液终止反应,离心,酶标仪测试波长366 nm处测定上清液的吸光度,每个样品重复3次试验,蛋白酶活力(A)以1 mL上清液在单位时间内的吸光度变化来表示,单位为ΔA·h-1·mL-1,蛋白酶活力(A)值计算如公式(1)所示:
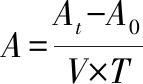
(1)
式中:At,样品的吸光度;A0,空白对照的吸光度;V,上清液体积,mL;T,时间,h。
蛋白水解致腐风险的分级:综合定性(脱脂乳琼脂平板试验)与定量(偶氮酪蛋白法)指标对假单胞菌的蛋白水解致腐风险进行分级。鉴于脱脂乳平板法主要反映菌落生长状态下的表观特征,而偶氮酪蛋白法能更精准地量化上清液中的实际蛋白酶活力,因此本研究以定量酶活力(A)为主要分级依据。首先进行表型筛选:分光光度法测定偶氮酪蛋白时,A<0.1 ΔA·h-1·mL-1通常被认为是接近空白对照的仪器噪音或无显著意义的微量背景值,因此将平板水解圈直径为0 mm且A<0.1 ΔA·h-1·mL-1的菌株界定为“无风险(■)”。其次针对具备有效蛋白水解活性的剩余菌株,为避免平板扩散系数对实际酶活力量化的数学干扰,提取各菌株的偶氮酪蛋白酶活力A值作为核心评估变量。根据树状图的聚类结果,将阳性菌株客观划分为低风险(■)、中风险(■)与高风险(■)3个级别。
1.3.4 分型鉴定
1.3.4.1 16S rRNA基因测序与序列分析
将平板划线分离到的单菌落送至上海生工生物工程股份有限公司进行16S rRNA基因测序,以27F:AGAGTTTGATCMTGGCTCAG为正向引物,以1492R:GGTTACCTTGTTACGACTT为反向引物,测序读长为1 500 bp。将拼接完整的测序序列,在NCBI数据库上进行核苷酸序列比对,确定鉴定结果,并基于16S rRNA基因序列开展菌株分子分型与聚类分析,明确不同菌株间的遗传亲缘关系。
1.3.4.2 核糖体分型分析
按照RiboPrinter全自动微生物基因指纹鉴定系统操作说明,挑取平板上分离纯化的单菌落置于含有缓冲液的离心管中,涡旋混匀制备成浑浊菌悬液。吸取30 μL菌悬液加入微量反应板孔内,将反应板置于细菌热处理器上进行热处理。向热处理后的样本中分别加入裂解液A和裂解液B,混匀后上机。选择EcoR I酶为限制性内切酶,启动系统进行后续的自动化操作,包括DNA酶切、电泳分离、膜转移、杂交与成像,最终获得菌株的核糖体指纹图谱。
1.3.4.3 基因组提取与测序
从31株假单胞菌的全基因组中提取7个看家基因(gltA、gyrB、ileS、acnB、recA、rpoB、rpoD)和蛋白酶相关基因(aprD、aprE、aprF)序列信息。具体流程如下:
收集各菌株的对数生长期菌体沉淀,参照基因组DNA提取试剂盒说明书进行DNA提取。使用Qubit 4荧光计配合Qubit dsDNA HS分析试剂盒测定DNA浓度。参照DNBSEQ-G99RS高通量测序试剂套装说明书制备测序加载体系,使用华大智造DNBSEQ-G99基因测序仪进行全基因组测序。
1.4 数据处理分析
数据整理与描述性统计:应用Excel 2019对假单胞菌产蛋白酶情况试验数据进行整理,数据用“平均值±标准差”表示。应用GraphPad Prism(10.4.1)进行统计图的制作。使用SPSS Statistics(30.0.0)中的系统聚类分析(Ward法,欧氏距离)寻找数据内部的自然断点(Natural breaks),计算31株菌的风险等级聚类结果。
16S rRNA基因序列分析:将31株假单胞菌的16S rRNA基因序列导入到MEGA 11软件中,选择ClustalW进行多序列比对[21],删除比对后两端未对齐的序列区域,采用最大似然法构建聚类树。根据MEGA 11软件的“寻找模型”功能的计算结果,选择Kimura 2-parameter模型为替代模型,并采用伽马分布模型处理位点间进化速率的不确定性,通过迭代1 000 次计算聚类树的自展值[22]。
核糖体指纹图谱分析:将31株假单胞菌的核糖体指纹图谱结果导入到BioNumerics 7.6软件中,根据图谱相似性进行聚类分析。
MLST-like分型分析:使用CLC Genomics Workbench(26.0.1)对31株假单胞菌的全基因组测序得到的10个基因位点进行序列分析,包括7个看家基因(gltA、gyrB、ileS、acnB、recA、rpoB、rpoD)及3个蛋白酶相关功能基因(aprD、aprE、aprF)进行MLST-like分型分析。看家基因均为MLST分析中的经典候选标记,编码细胞基本生命活动所必需的蛋白质,具有序列保守、种内变异适中、种间区分度高等特点。蛋白酶相关基因编码碱性蛋白酶分泌系统核心组分,引入该功能基因簇有助于揭示菌株在适应性性状上的遗传分化特征。具体流程如下:从NCBI数据库下载对应的参考基因序列(见表1)。以各个参考基因为参照,分别进行序列比对,再按照(gltA-gyrB-ileS-acnB-recA-rpoB-rpoD-aprD-aprE-aprF)顺序串联拼接比对结果,基于Jukes-Cantor替代模型,采用最大似然法,对拼接后的序列构建MLST-like分型聚类树。
表1 假单胞菌的看家基因和蛋白酶相关的功能基因
Table 1 Housekeeping genes and protease-related functional genes of Pseudomonas
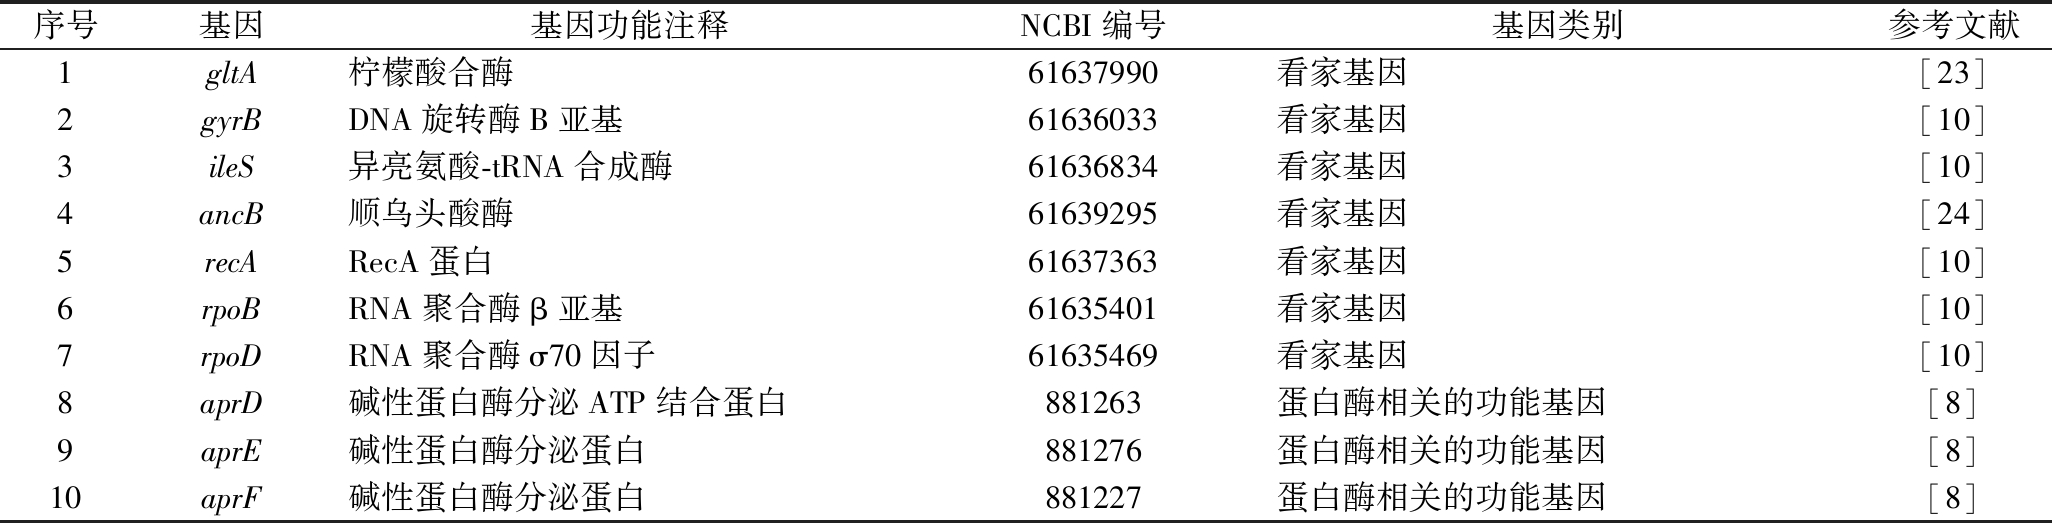
序号基因基因功能注释NCBI编号基因类别参考文献1gltA柠檬酸合酶61637990看家基因[23]2gyrBDNA旋转酶B亚基61636033看家基因[10]3ileS异亮氨酸-tRNA合成酶61636834看家基因[10]4ancB顺乌头酸酶61639295看家基因[24]5recARecA蛋白61637363看家基因[10]6rpoBRNA聚合酶β亚基61635401看家基因[10]7rpoDRNA聚合酶σ70因子61635469看家基因[10]8aprD碱性蛋白酶分泌ATP结合蛋白881263蛋白酶相关的功能基因[8]9aprE碱性蛋白酶分泌蛋白881276蛋白酶相关的功能基因[8]10aprF碱性蛋白酶分泌蛋白881227蛋白酶相关的功能基因[8]
2 结果与分析
2.1 产酶分析
在分析的31株假单胞菌中,有67.7%的菌株(21株)在脱脂乳琼脂平板的接种孔周围形成了水解圈,具备蛋白水解能力,其余10株,则不具备蛋白水解能力(表2)。该结果与Hu等[25]的研究结果相近,该研究在28 ℃培养条件下观察到61.38%的假单胞菌可在脱脂乳平板上形成水解圈。根据水解圈直径的分布情况,具有蛋白水解能力的21株假单胞菌中:水解圈直径在10.0~15.0 mm的菌株占4.76%,在15.0~20.0 mm的占52.38%,在20.0~25.0 mm的占42.86%。其中,菌株CICC23251显示出最高的蛋白水解能力。
表2 假单胞菌属产蛋白酶情况
Table 2 Protease production by Pseudomonas spp.
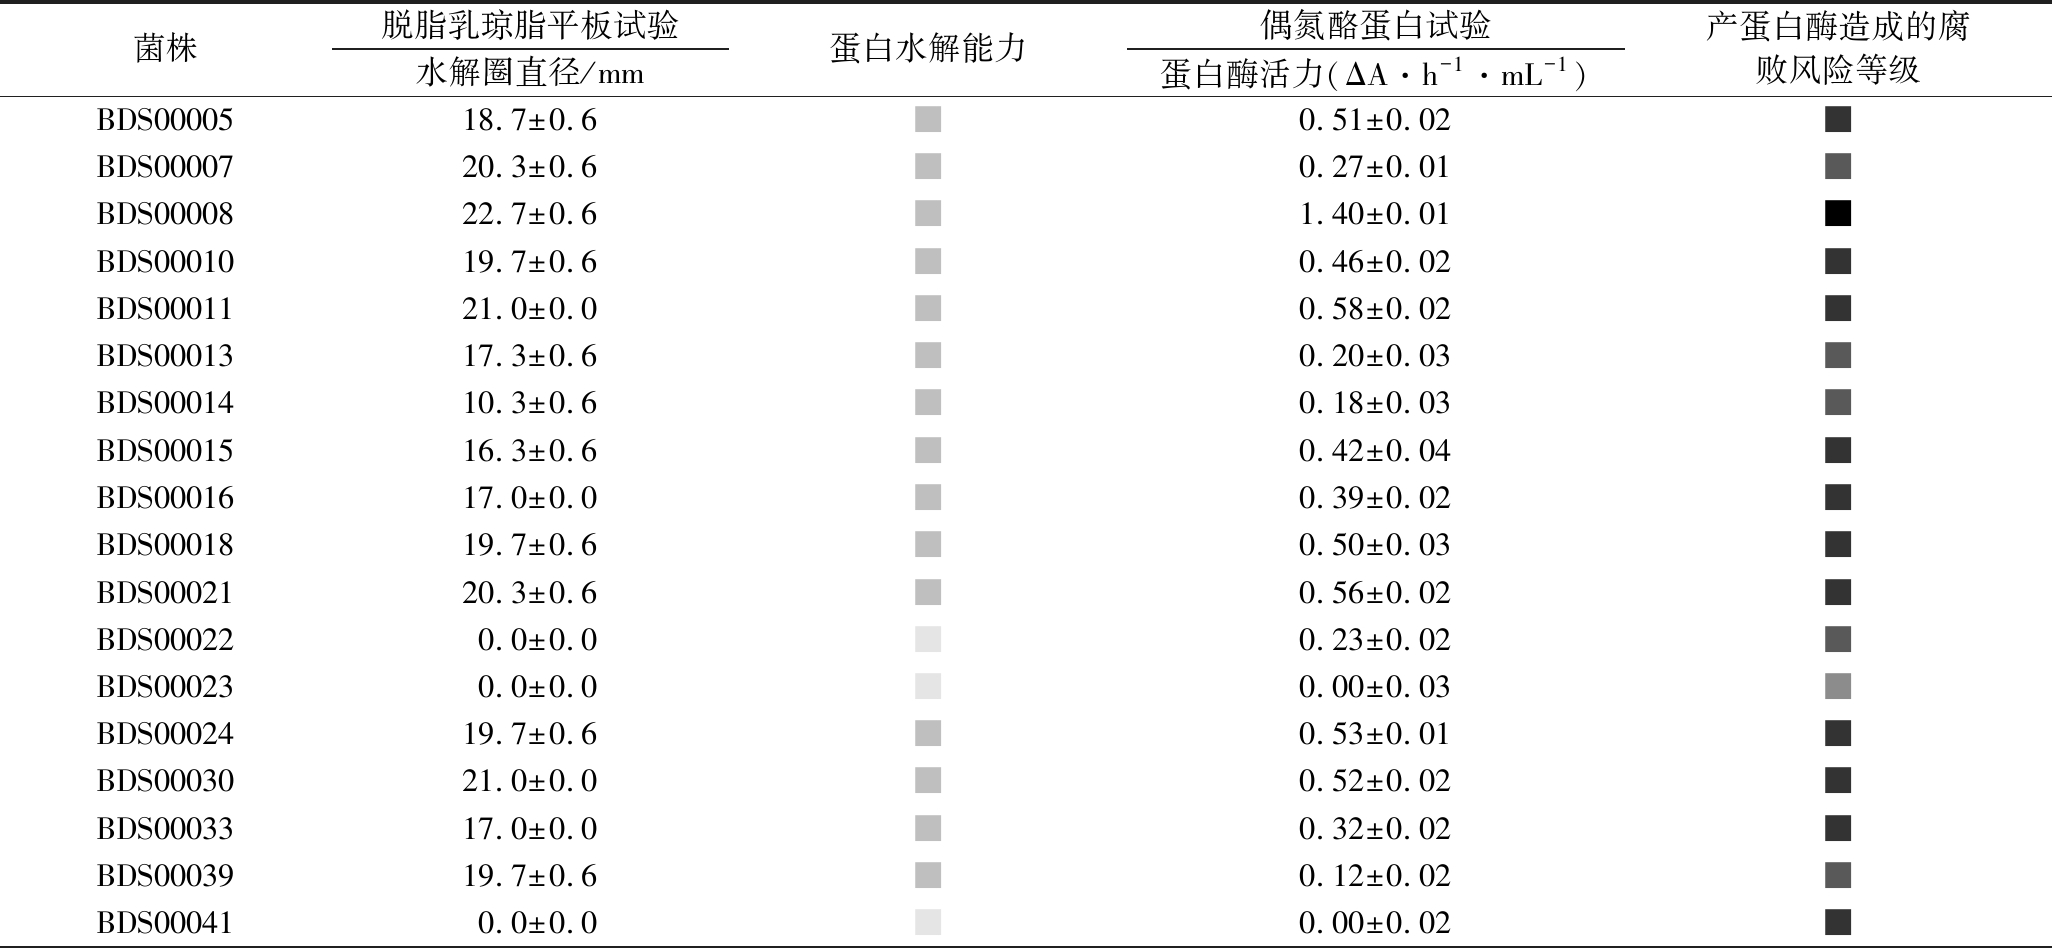
菌株脱脂乳琼脂平板试验水解圈直径/mm蛋白水解能力偶氮酪蛋白试验蛋白酶活力(ΔA·h-1·mL-1)产蛋白酶造成的腐败风险等级BDS0000518.7±0.6■0.51±0.02■BDS0000720.3±0.6■0.27±0.01■BDS0000822.7±0.6■1.40±0.01■BDS0001019.7±0.6■0.46±0.02■BDS0001121.0±0.0■0.58±0.02■BDS0001317.3±0.6■0.20±0.03■BDS0001410.3±0.6■0.18±0.03■BDS0001516.3±0.6■0.42±0.04■BDS0001617.0±0.0■0.39±0.02■BDS0001819.7±0.6■0.50±0.03■BDS0002120.3±0.6■0.56±0.02■BDS000220.0±0.0■0.23±0.02■BDS000230.0±0.0■0.00±0.03■BDS0002419.7±0.6■0.53±0.01■BDS0003021.0±0.0■0.52±0.02■BDS0003317.0±0.0■0.32±0.02■BDS0003919.7±0.6■0.12±0.02■BDS000410.0±0.0■0.00±0.02■
续表2
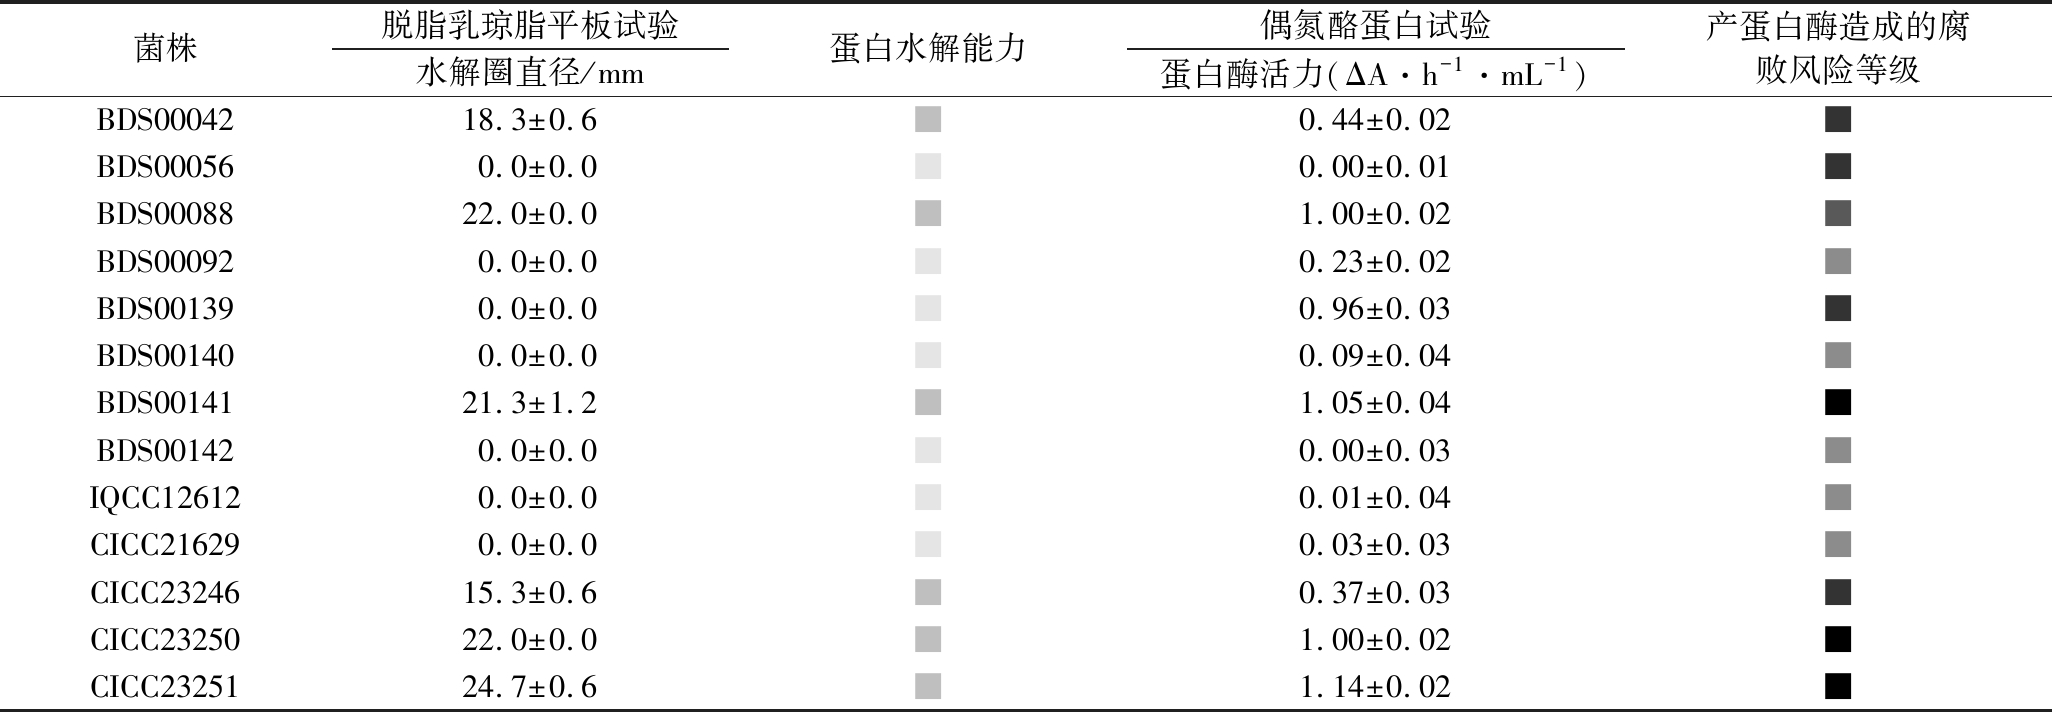
注:蛋白水解能力判定:无蛋白水解能力,■;有蛋白水解能力,■。产蛋白酶造成的腐败风险等级:无风险:■;低风险:■;中风险:■;高风险:■。分级界限:(1)无风险(水解圈直径=0 mm,蛋白水解活性<0.1 ΔA·h-1·mL-1);(2)低风险(0.1 ΔA·h-1·mL-1<蛋白水解活性≤0.3 ΔA·h-1·mL-1);(3)中风险(0.3 ΔA·h-1·mL-1<蛋白水解活性≤0.6 ΔA·h-1·mL-1);(4)高风险(蛋白水解活性﹥0.6 ΔA·h-1·mL-1)。
菌株脱脂乳琼脂平板试验水解圈直径/mm蛋白水解能力偶氮酪蛋白试验蛋白酶活力(ΔA·h-1·mL-1)产蛋白酶造成的腐败风险等级BDS0004218.3±0.6■0.44±0.02■BDS000560.0±0.0■0.00±0.01■BDS0008822.0±0.0■1.00±0.02■BDS000920.0±0.0■0.23±0.02■BDS001390.0±0.0■0.96±0.03■BDS001400.0±0.0■0.09±0.04■BDS0014121.3±1.2■1.05±0.04■BDS001420.0±0.0■0.00±0.03■IQCC126120.0±0.0■0.01±0.04■CICC216290.0±0.0■0.03±0.03■CICC2324615.3±0.6■0.37±0.03■CICC2325022.0±0.0■1.00±0.02■CICC2325124.7±0.6■1.14±0.02■
通过偶氮酪蛋白法测定假单胞菌蛋白酶活力,其活性范围从BDS00056菌株的0.00±0.01 ΔA·h-1·mL-1到菌株BDS00008的1.40±0.01 ΔA·h-1·mL-1,蛋白水解阳性菌株平均蛋白酶活力为0.56 ΔA·h-1·mL-1。其中菌株BDS00023、菌株BDS00041、菌株BDS00142和菌株BDS00056不具备蛋白酶活力;菌株BDS00140、IQCC12612和CICC21629在偶氮酪蛋白试验中测得的蛋白酶活力较低,分别为(0.09±0.04)、(0.01±0.04)、(0.03±0.03) ΔA·h-1·mL-1,在本次试验条件下认为这3株菌不具备蛋白酶活力。上述结果与脱脂乳琼脂平板试验结果一致。此外,部分假单胞菌在脱脂乳琼脂平板试验中虽未形成水解圈,但在偶氮酪蛋白测定试验中表现出了蛋白酶活力,包括菌株BDS00022、菌株BDS00139和BDS00092。
本研究发现,在脱脂乳琼脂平板上形成较大水解圈的假单胞菌(直径≥15.0 mm),在偶氮酪蛋白试验中并不一定表现出中等及以上强度的蛋白酶活力(A>0.30 ΔA·h-1·mL-1)。例如,菌株BDS00039(水解圈直径19.7 mm)与BDS00010和BDS00024的水解圈大小相同,但其定量酶活力仅为0.12 ΔA·h-1·mL-1,明显偏低。与此同时,未产生水解圈的菌株仍可能检测到蛋白酶活力,例如未形成明显水解圈的菌株BDS00139却显示出酶活力(0.96 ΔA·h-1·mL-1)。Aguilera-Toro等[8]的研究也得出了类似的结论。这种差异可能与假单胞菌蛋白酶结构的多样性有关[26]。
根据脱脂乳琼脂平板上的透明圈大小与偶氮酪蛋白定量测定结果,对本实验条件下假单胞菌属水解蛋白造成的腐败风险进行等级划分。平板水解圈直径为0 mm且A<0.1 ΔA·h-1·mL-1的蛋白水解阴性菌株界定为“无风险(■)”,共有7株菌(表2)。针对具备有效蛋白水解活性的剩余菌株,提取各菌株的偶氮酪蛋白酶活力A值作为核心评估变量,在SPSS 软件中绘制系统聚类分析树状图,聚类结果结果如表2和图1所示。聚类结果显示,菌株可依据活性高低自然聚为3类。据此,将蛋白水解致腐风险等级划分为3级:低风险(0.1 ΔA·h-1·mL-1
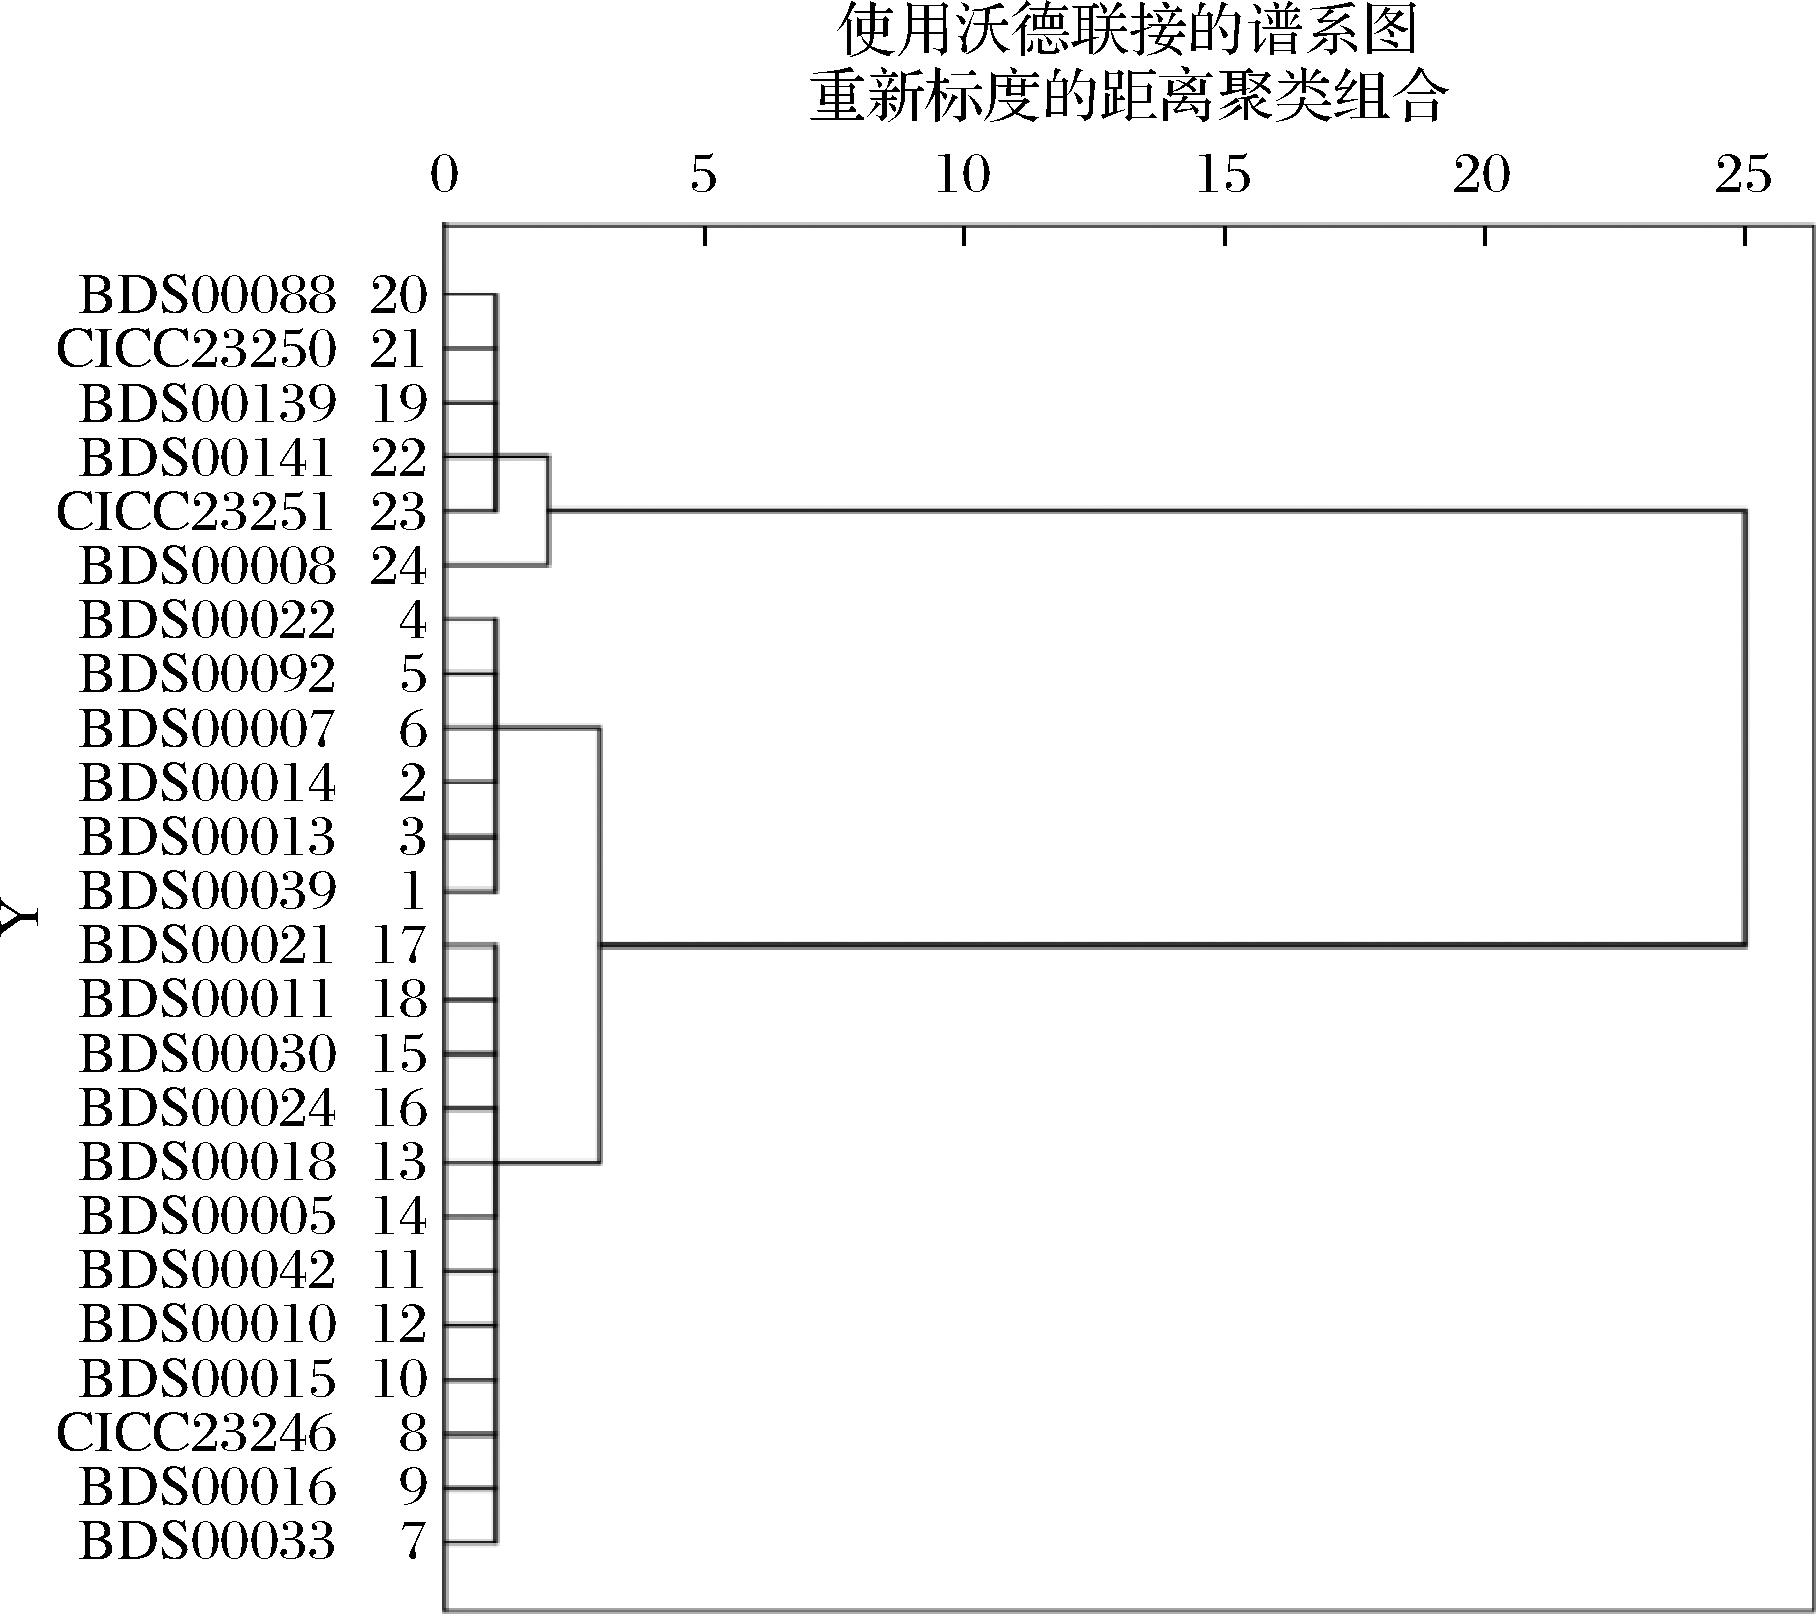
图1 基于偶氮酪蛋白酶活力定量试验的假单胞菌系统聚类树状图
Fig.1 Hierarchical clustering dendrogram of Pseudomonas based on quantitative azocasein protease activity assay
2.2 鉴定结果
将16S rRNA基因序列相似性的94.5%阈值作为确定细菌菌株与现有属或新属隶属关系的推荐值[27]。如表3所示,对31株假单胞菌属菌株的分子鉴定结果分析表明,16S rRNA基因序列分析在属水平鉴定中展现出高度可靠性。此外,部分假单胞菌可推测到种水平。相较于16S rRNA基因序列分析,核糖体分型能更准确地进行种水平鉴定,31株假单胞菌中83.9%的假单胞菌(26株)可鉴定至种水平,共涉及7个不同的菌种。标准参考菌株的鉴定结果与预期相符,且相似性较高(87.0%~98.0%),验证了核糖体分型鉴定结果的可靠性。上述2种方法为本研究提供了菌株在属水平(16S rRNA)和种水平(核糖体分型为主)的初步分子标识,为后续探究分子分型结果与蛋白水解表型分布之间的一致性奠定了基础。
表3 16S rRNA基因序列和核糖体分型鉴定结果
Table 3 Identification results of 16S rRNA gene sequences and ribotyping
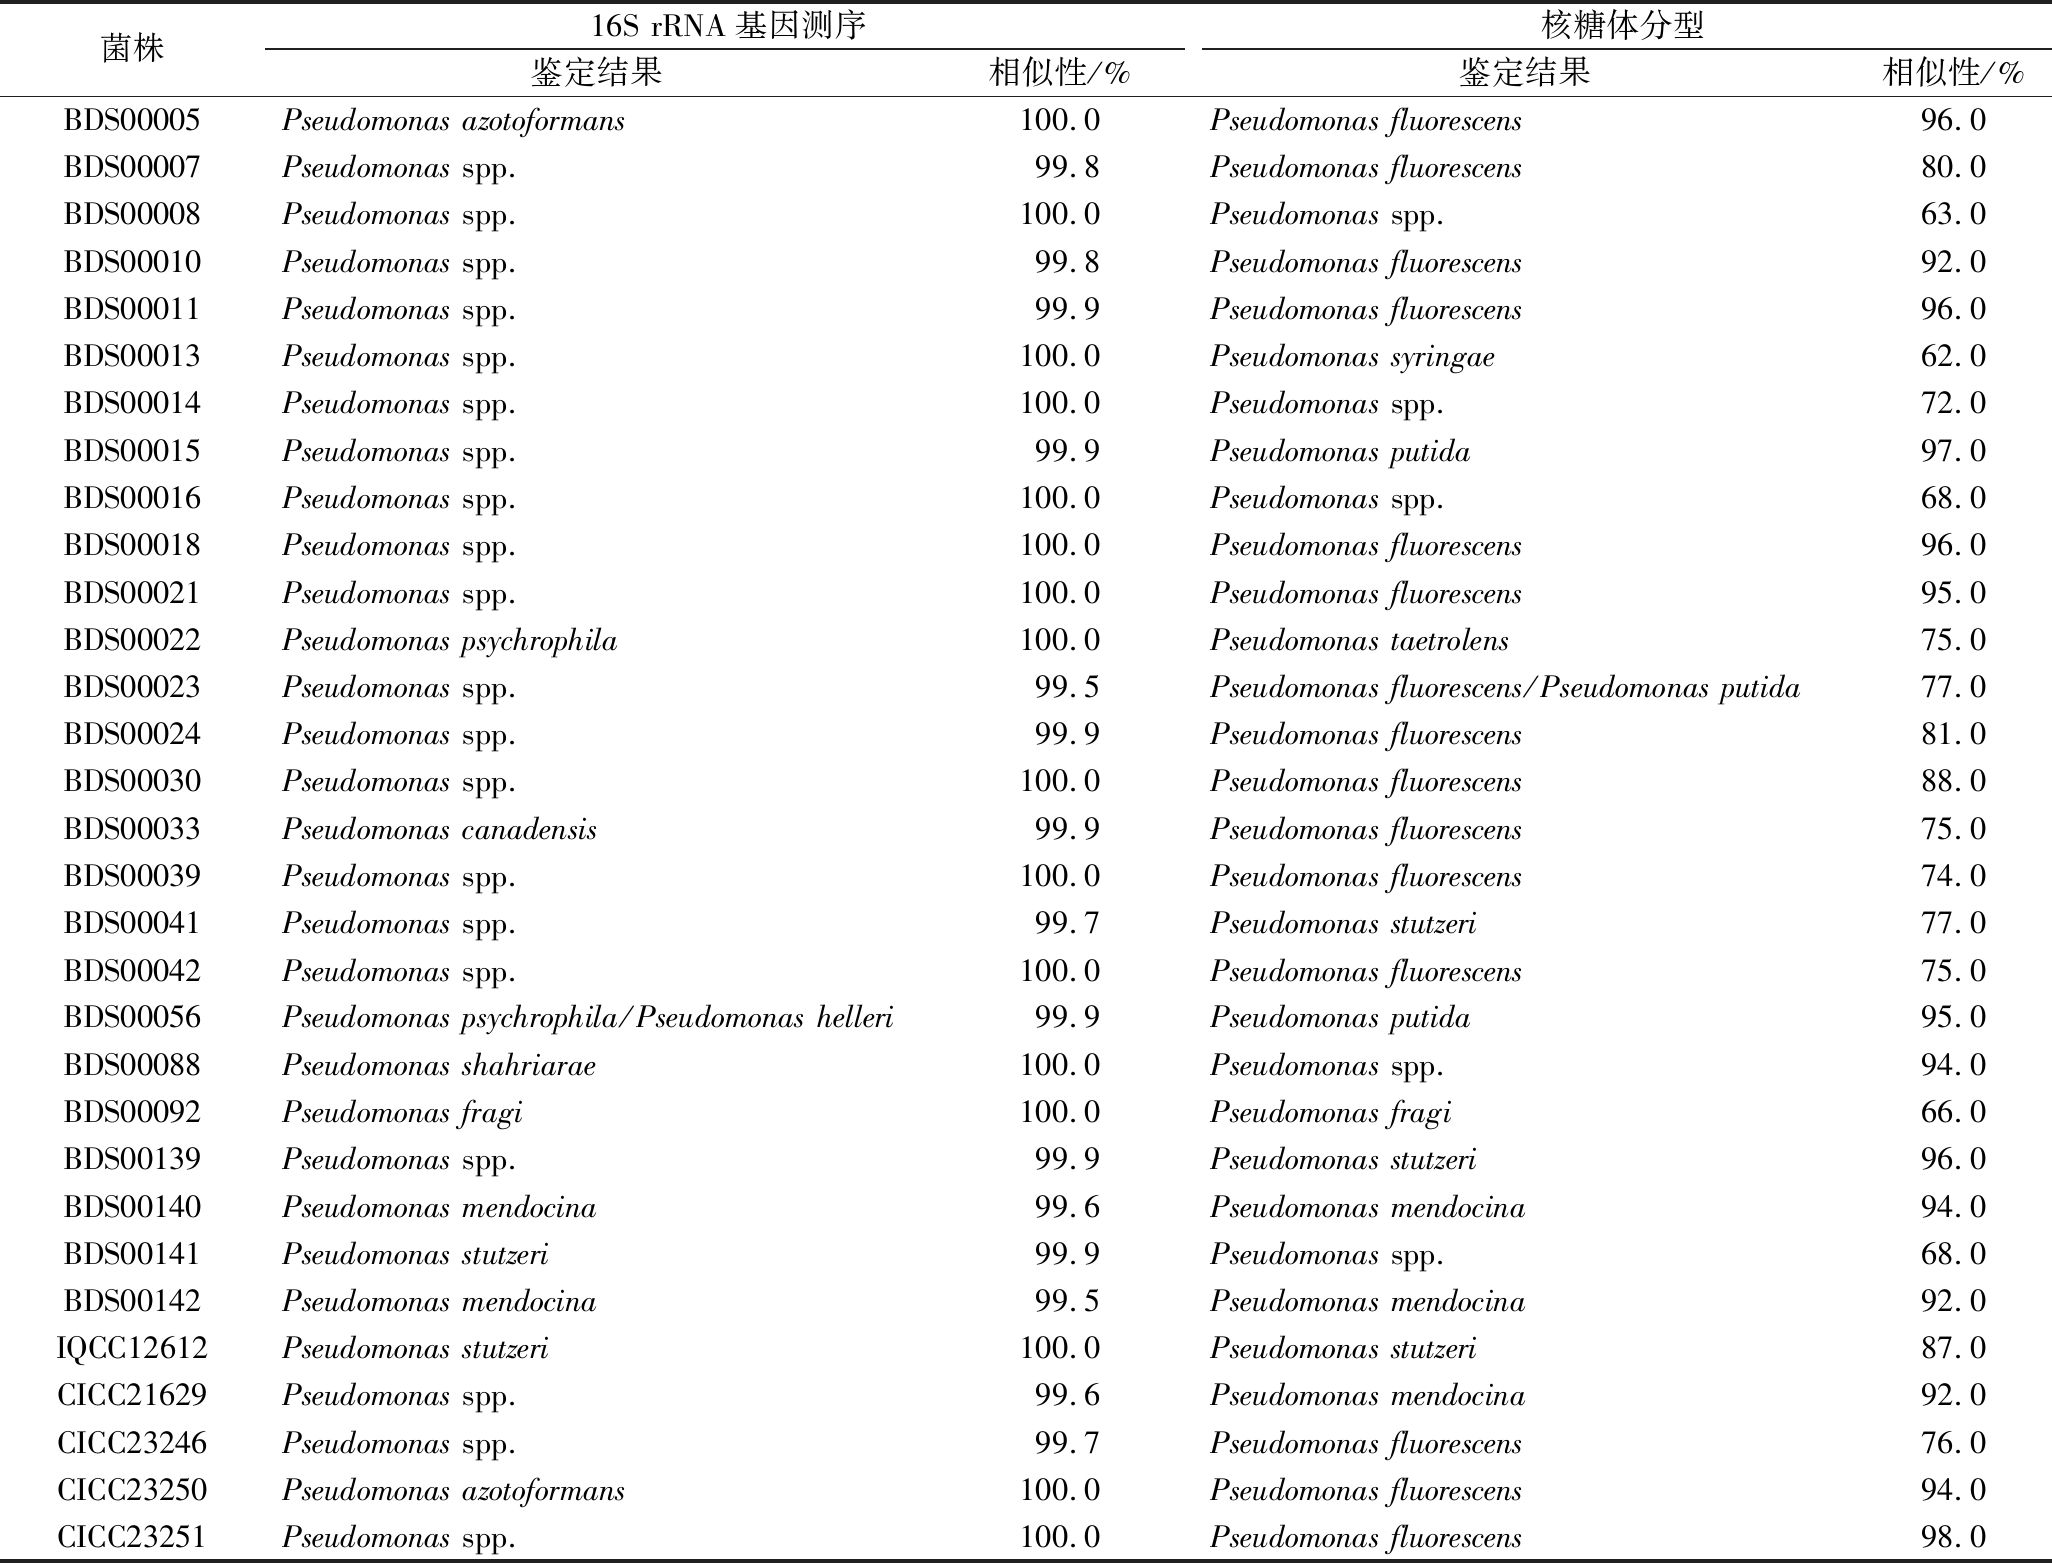
菌株16S rRNA基因测序核糖体分型鉴定结果相似性/%鉴定结果相似性/%BDS00005Pseudomonas azotoformans100.0Pseudomonas fluorescens96.0BDS00007Pseudomonas spp.99.8Pseudomonas fluorescens80.0BDS00008Pseudomonas spp.100.0Pseudomonas spp.63.0BDS00010Pseudomonas spp.99.8Pseudomonas fluorescens92.0BDS00011Pseudomonas spp.99.9Pseudomonas fluorescens96.0BDS00013Pseudomonas spp.100.0Pseudomonas syringae62.0BDS00014Pseudomonas spp.100.0Pseudomonas spp.72.0BDS00015Pseudomonas spp.99.9Pseudomonas putida97.0BDS00016Pseudomonas spp.100.0Pseudomonas spp.68.0BDS00018Pseudomonas spp.100.0Pseudomonas fluorescens96.0BDS00021Pseudomonas spp.100.0Pseudomonas fluorescens95.0BDS00022Pseudomonas psychrophila100.0Pseudomonas taetrolens75.0BDS00023Pseudomonas spp.99.5Pseudomonas fluorescens/Pseudomonas putida77.0BDS00024Pseudomonas spp.99.9Pseudomonas fluorescens81.0BDS00030Pseudomonas spp.100.0Pseudomonas fluorescens88.0BDS00033Pseudomonas canadensis99.9Pseudomonas fluorescens75.0BDS00039Pseudomonas spp.100.0Pseudomonas fluorescens74.0BDS00041Pseudomonas spp.99.7Pseudomonas stutzeri77.0BDS00042Pseudomonas spp.100.0Pseudomonas fluorescens75.0BDS00056Pseudomonas psychrophila/Pseudomonas helleri99.9Pseudomonas putida95.0BDS00088Pseudomonas shahriarae100.0Pseudomonas spp.94.0BDS00092Pseudomonas fragi100.0Pseudomonas fragi66.0BDS00139Pseudomonas spp.99.9Pseudomonas stutzeri96.0BDS00140Pseudomonas mendocina99.6Pseudomonas mendocina94.0BDS00141Pseudomonas stutzeri99.9Pseudomonas spp.68.0BDS00142Pseudomonas mendocina99.5Pseudomonas mendocina92.0IQCC12612Pseudomonas stutzeri100.0Pseudomonas stutzeri87.0CICC21629Pseudomonas spp.99.6Pseudomonas mendocina92.0CICC23246Pseudomonas spp.99.7Pseudomonas fluorescens76.0CICC23250Pseudomonas azotoformans100.0Pseudomonas fluorescens94.0CICC23251Pseudomonas spp.100.0Pseudomonas fluorescens98.0
2.3 假单胞菌表型特征的组间比较
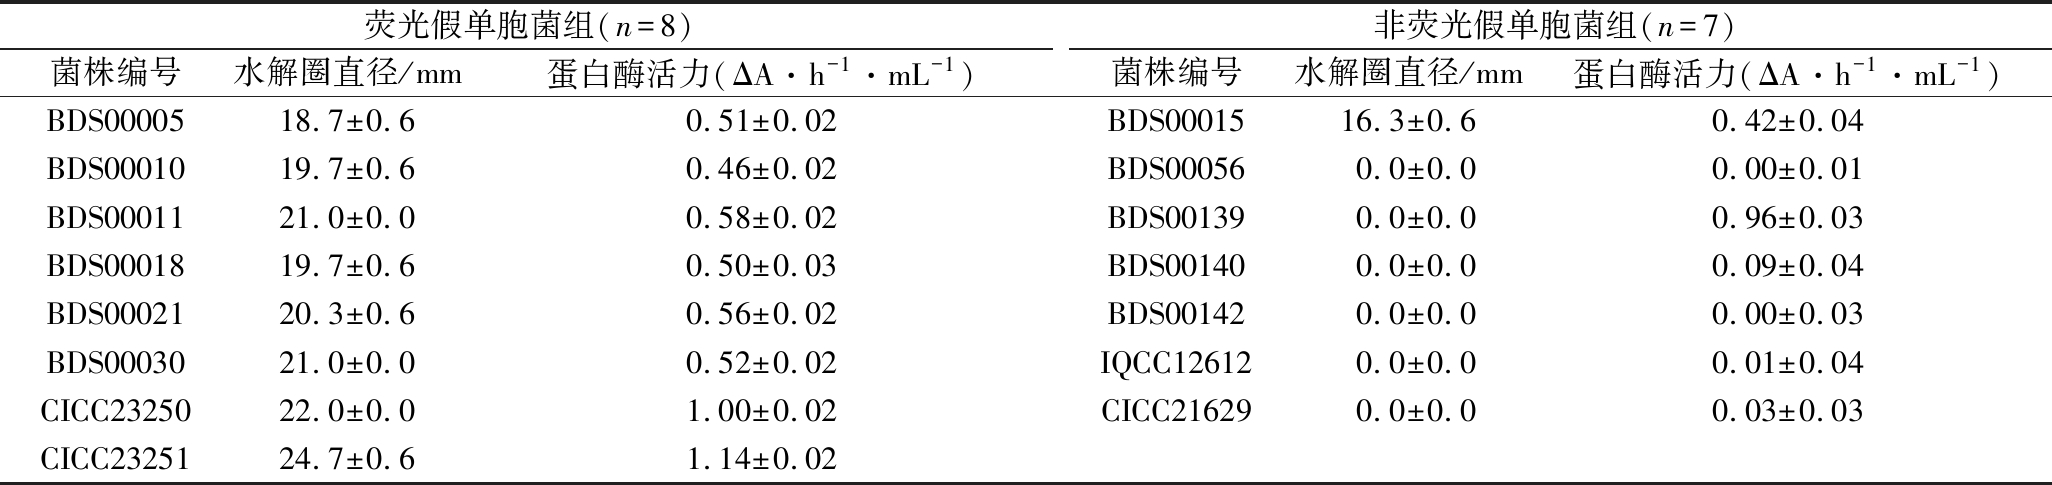
考虑到牛乳源的假单胞菌中荧光假单胞菌的检出率最高[28],进一步考察荧光假单胞菌与其他假单胞菌的蛋白水解能力是否存在明显差异。根据核糖体分型鉴定结果相似度,选择置信度较高(相似度>85.0%)的鉴定结果作为拟分组比较的菌株选择依据。如表4所示,其中荧光假单胞菌组共包含8株菌,非荧光假单胞菌组共包含7株菌。
表4 荧光假单胞菌组与非荧光假单胞菌组菌株的选择结果及其蛋白水解特性
Table 4 Selection results and proteolytic properties of strains in the P.fluorescens group and non-P.fluorescens group
荧光假单胞菌组(n=8)非荧光假单胞菌组(n=7)菌株编号水解圈直径/mm蛋白酶活力(ΔA·h-1·mL-1)菌株编号水解圈直径/mm蛋白酶活力(ΔA·h-1·mL-1)BDS0000518.7±0.60.51±0.02BDS0001516.3±0.60.42±0.04BDS0001019.7±0.60.46±0.02BDS000560.0±0.00.00±0.01BDS0001121.0±0.00.58±0.02BDS001390.0±0.00.96±0.03BDS0001819.7±0.60.50±0.03BDS001400.0±0.00.09±0.04BDS0002120.3±0.60.56±0.02BDS001420.0±0.00.00±0.03BDS0003021.0±0.00.52±0.02IQCC126120.0±0.00.01±0.04CICC2325022.0±0.01.00±0.02CICC216290.0±0.00.03±0.03CICC2325124.7±0.61.14±0.02
由表4可知,荧光假单胞菌组的水解圈直径均大于15.0 mm,其中标准菌株CICC23251的水解圈直径最大,组内水解圈直径集中分布在18.0~25.0 mm范围,蛋白酶活力为0.46~1.14 ΔA·h-1·mL-1;非荧光假单胞菌组中仅菌株BDS00015在小孔周围形成了透明区域,且该组部分菌株被认为不具有蛋白水解风险。组间对比统计(图2)进一步显示,荧光假单胞菌组的水解圈直径显著大于非荧光假单胞菌组(P<0.000 1),其蛋白酶活力显著高于非荧光假单胞菌组(P<0.05)。由于水解圈的形成与菌株分泌蛋白酶水解脱脂乳中蛋白质直接相关,水解圈越大反映分泌蛋白酶能力越强[29],上述结果表明荧光假单胞菌组具有更突出的产蛋白酶能力以及更强的蛋白酶活力,因此该菌种在生牛乳中通过蛋白酶水解蛋白质的潜在风险也更高。
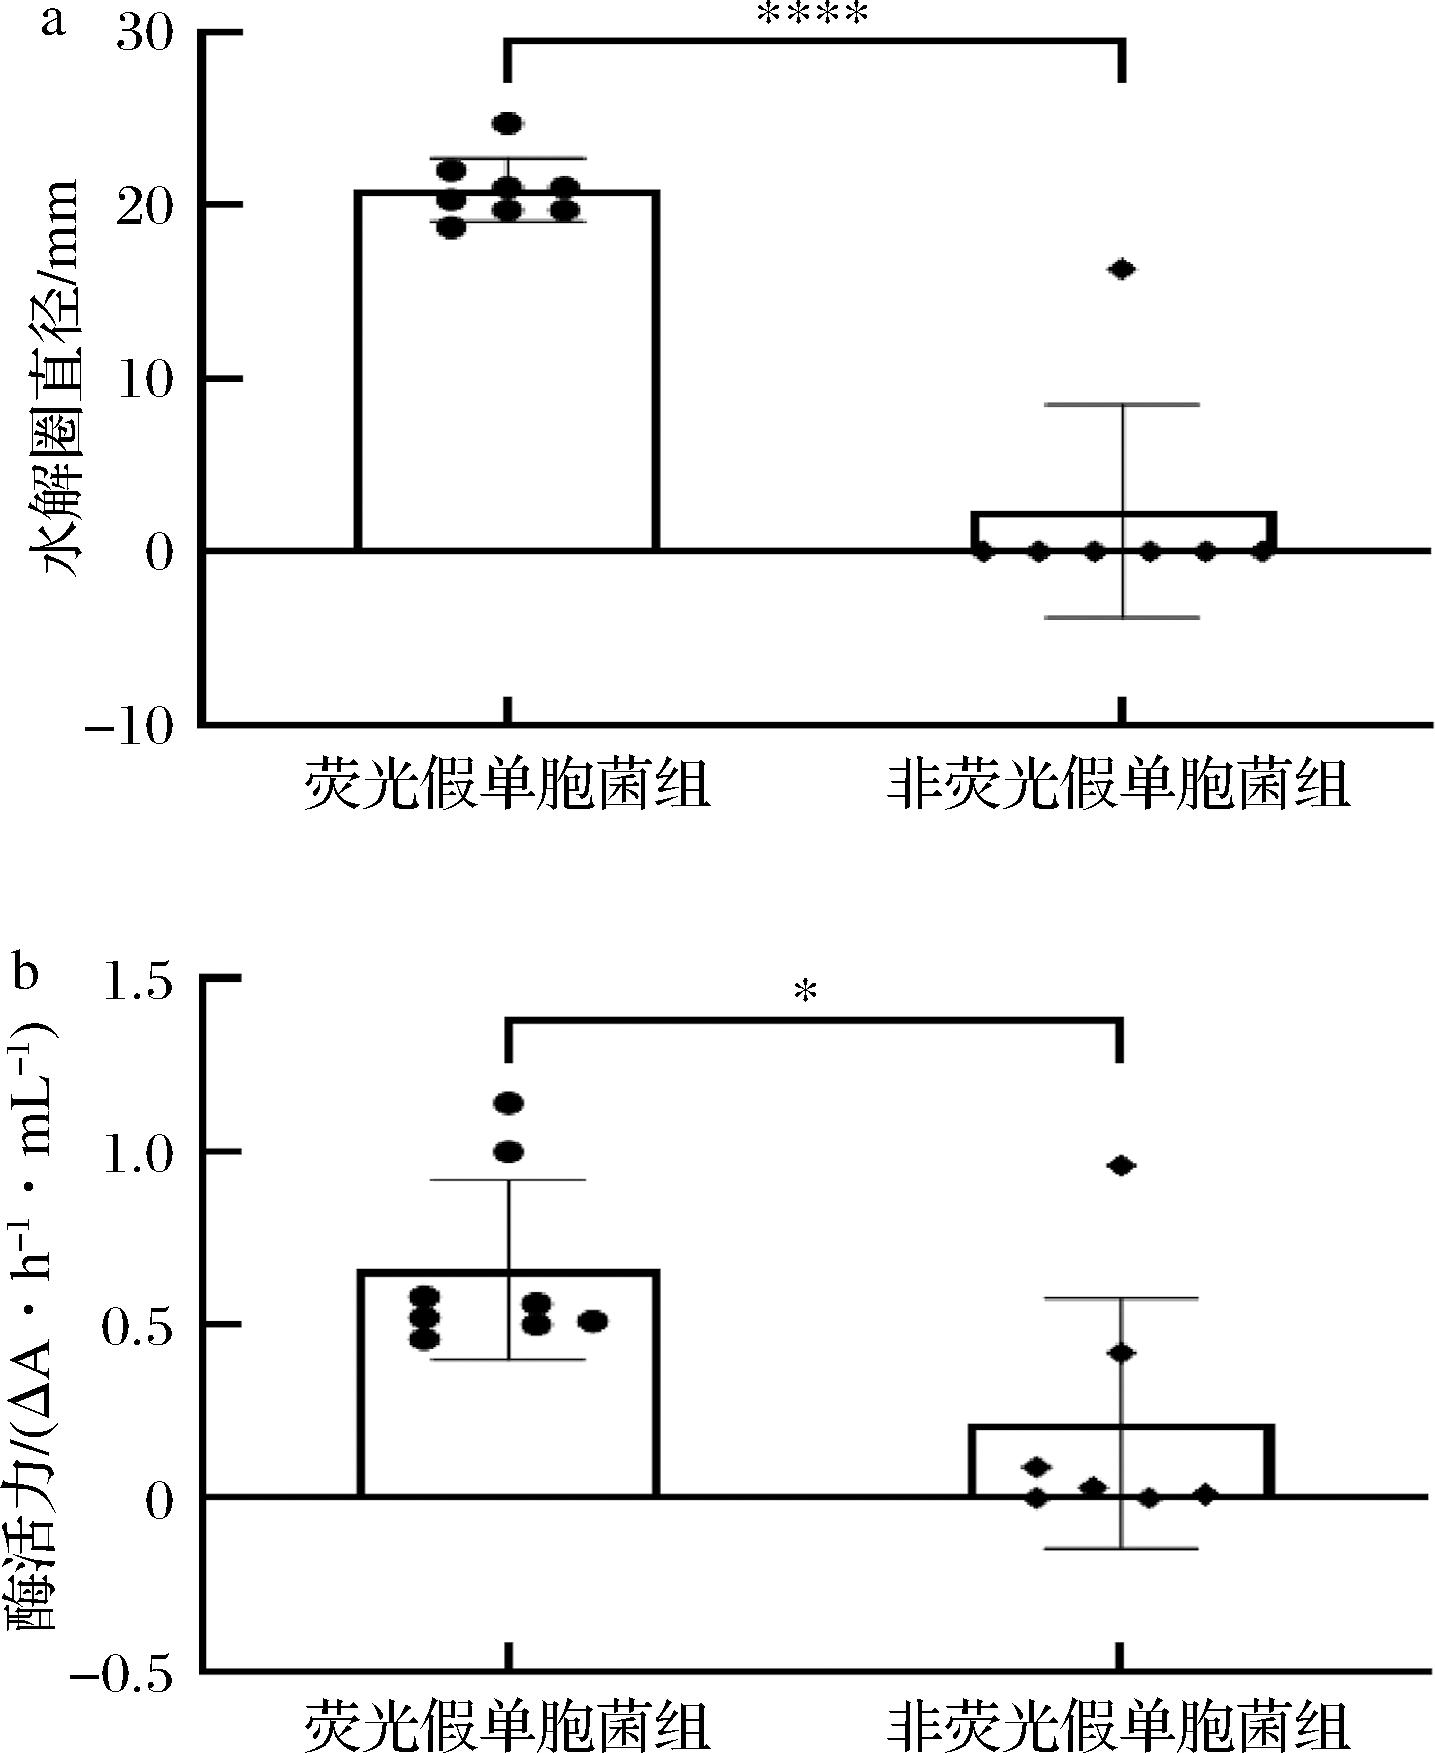
a-水解圈直径;b-蛋白酶活性
图2 两组假单胞菌的蛋白水解能力比较
Fig.2 Comparison of proteolytic activity between two groups of Pseudomonas
注:*表示P<0.05;****表示P<0.000 1。
2.4 分型聚类结果与蛋白水解表型分布的一致性分析
为评估不同分子分型方法对菌株蛋白水解腐败表型的区分和预测潜力,本研究分别基于16S rRNA基因序列、核糖体分型指纹图谱以及看家基因与功能基因组合(MLST-like)3种遗传标记,对31株菌进行聚类分析,并考察其聚类结果与表型分布的一致性。
2.4.1 16S rRNA基因序列分析聚类结果与蛋白水解表型分布的一致性分析
如图3所示,树状图显示,大部分分支节点的自展值较低,多数节点低于50%。这表明仅依靠16S rRNA基因序列对假单胞菌进行分类鉴定和系统发育分析时,可能存在对近缘假单胞菌的区分能力有限的问题[30]。
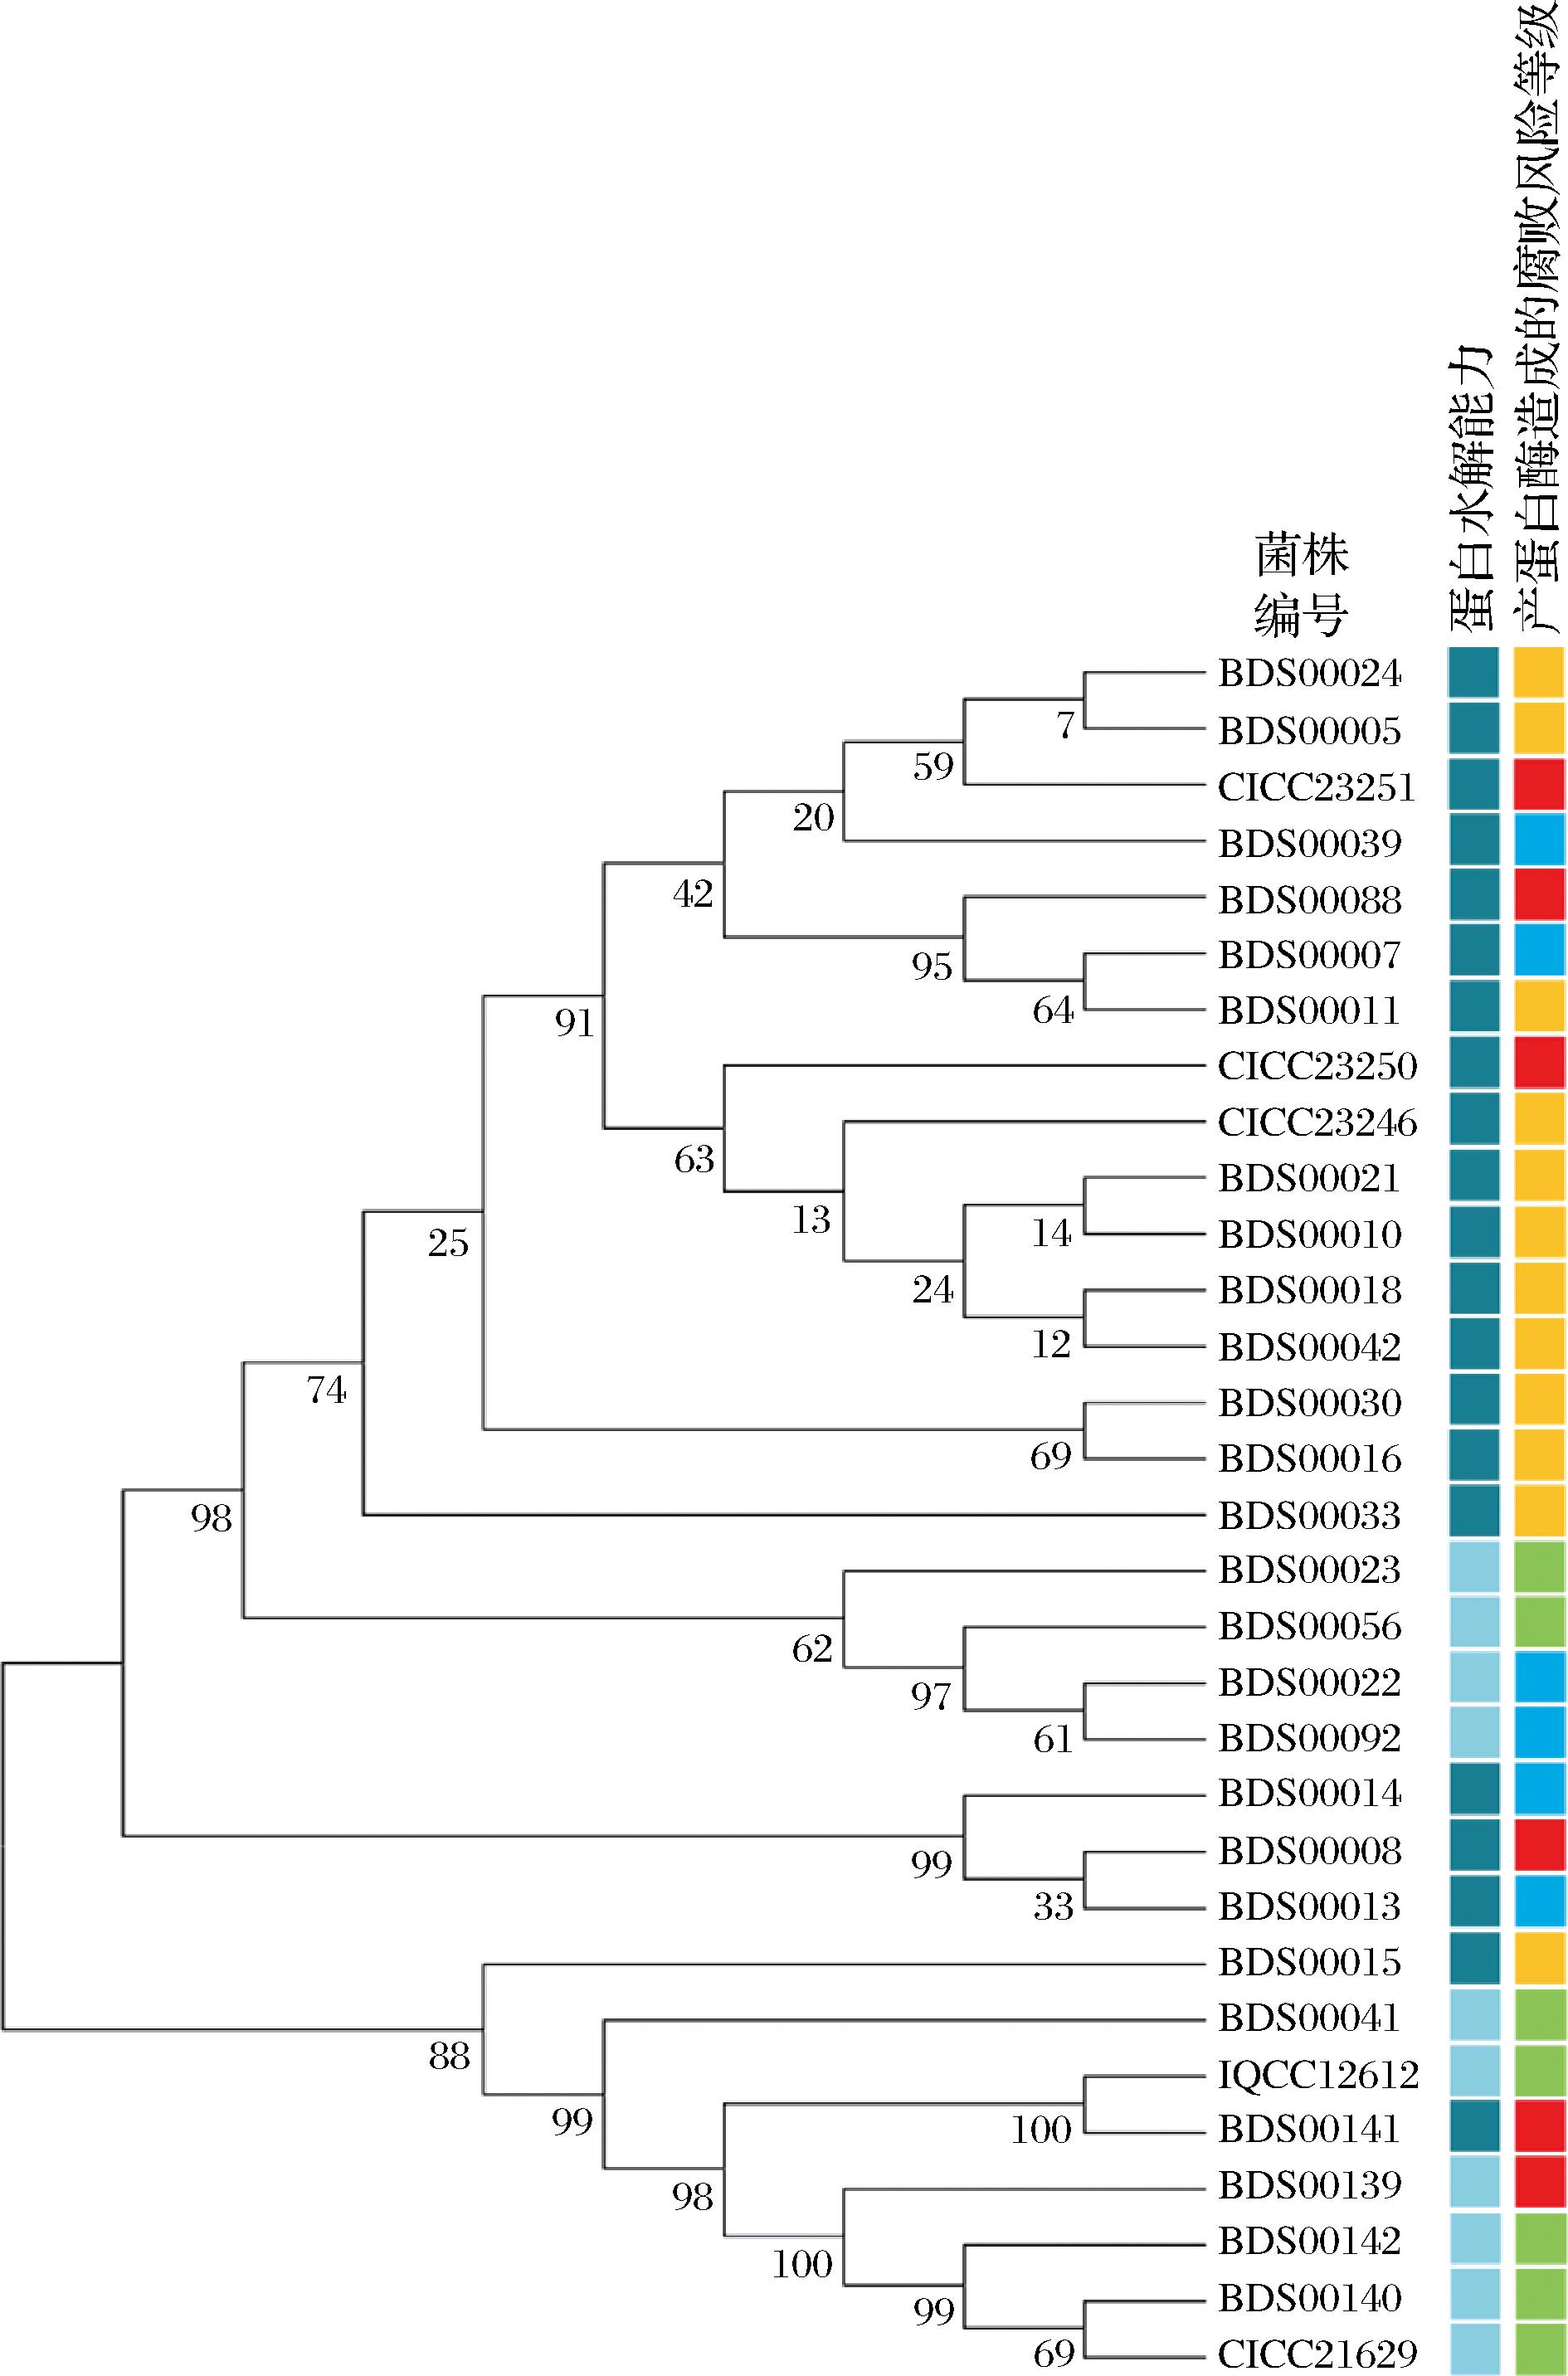
图3 基于 16S rRNA 基因序列分析的31株菌株聚类结果
Fig.3 Clustering results of 31 strains based on the 16S rRNA gene sequences analysis
注:蛋白水解能力判定:无蛋白水解能力,■;有蛋白水解能力,■。产蛋白酶造成的腐败风险等级:无风险:■;低风险:■;中风险:■; 高风险:■(下同)。
基于脱脂乳琼脂平板试验评估假单胞菌菌株的蛋白水解能力,并将其与16S rRNA基因序列分析得到的聚类结果进行比较,结果如图3右侧表型色块分布所示。蛋白水解阳性(深蓝色)和阴性(浅蓝色)的菌株在聚类树上的分布整体趋势一致,部分菌株在不同分支中交错混杂出现,如蛋白水解阳性的菌株BDS00015和BDS00141混在蛋白水解阴性菌株聚集度高的分支中。而对产蛋白酶造成的腐败风险等级这方面来看,代表不同致腐风险等级的色块(红、橙、蓝、绿)在各个分支中呈离散分布,例如在树状图最下方的同一主要分支内,高风险菌株(红色)与低风险(亮蓝色)、无风险(绿色)的菌株混杂出现。这表明,16S rRNA基因序列分析所得的聚类结果能一定程度有限区分蛋白水解阳性和阴性的菌株,但难以精准区分蛋白水解造成的腐败风险等级不同的菌株,其对该表型分布差异的解释能力相对较弱。因此,在本研究菌株范围内,16S rRNA基因测序技术更适用于假单胞菌属水平的快速初步鉴定或筛查,虽一定程度上可以初筛蛋白水解阳性的菌株,但准确率有限,可能存在假阴性。
2.4.2 核糖体分型聚类结果与蛋白水解表型分布的一致性分析
参考Gendel等[31]的方法,对31株假单胞菌的核糖体分型结果汇总,如表5所示。在分型方法上,本研究采用Ribogroup作为主要分组依据,其基于样本间核糖型图谱的直接相似性比较,便于比较菌株间的聚类关系及表型分布特征;相较之下,DuP-ID更侧重与参考模式库的匹配结果,较适用于模式识别。鉴于本研究关注菌株间分布特征及表型聚类趋势,故采用Ribogroup进行后续分析,适用于后续的群体结构与分布特征分析。依据上述Ribogroup分组原则,26株假单胞菌分离株及5株假单胞菌标准菌株共可分为23种不同的EcoR I核糖型。
表5 假单胞菌核糖体分型的DuP-ID与Ribogroup分析表
Table 5 DuP-ID and ribogroup analyses for ribotyping in Pseudomonas spp.
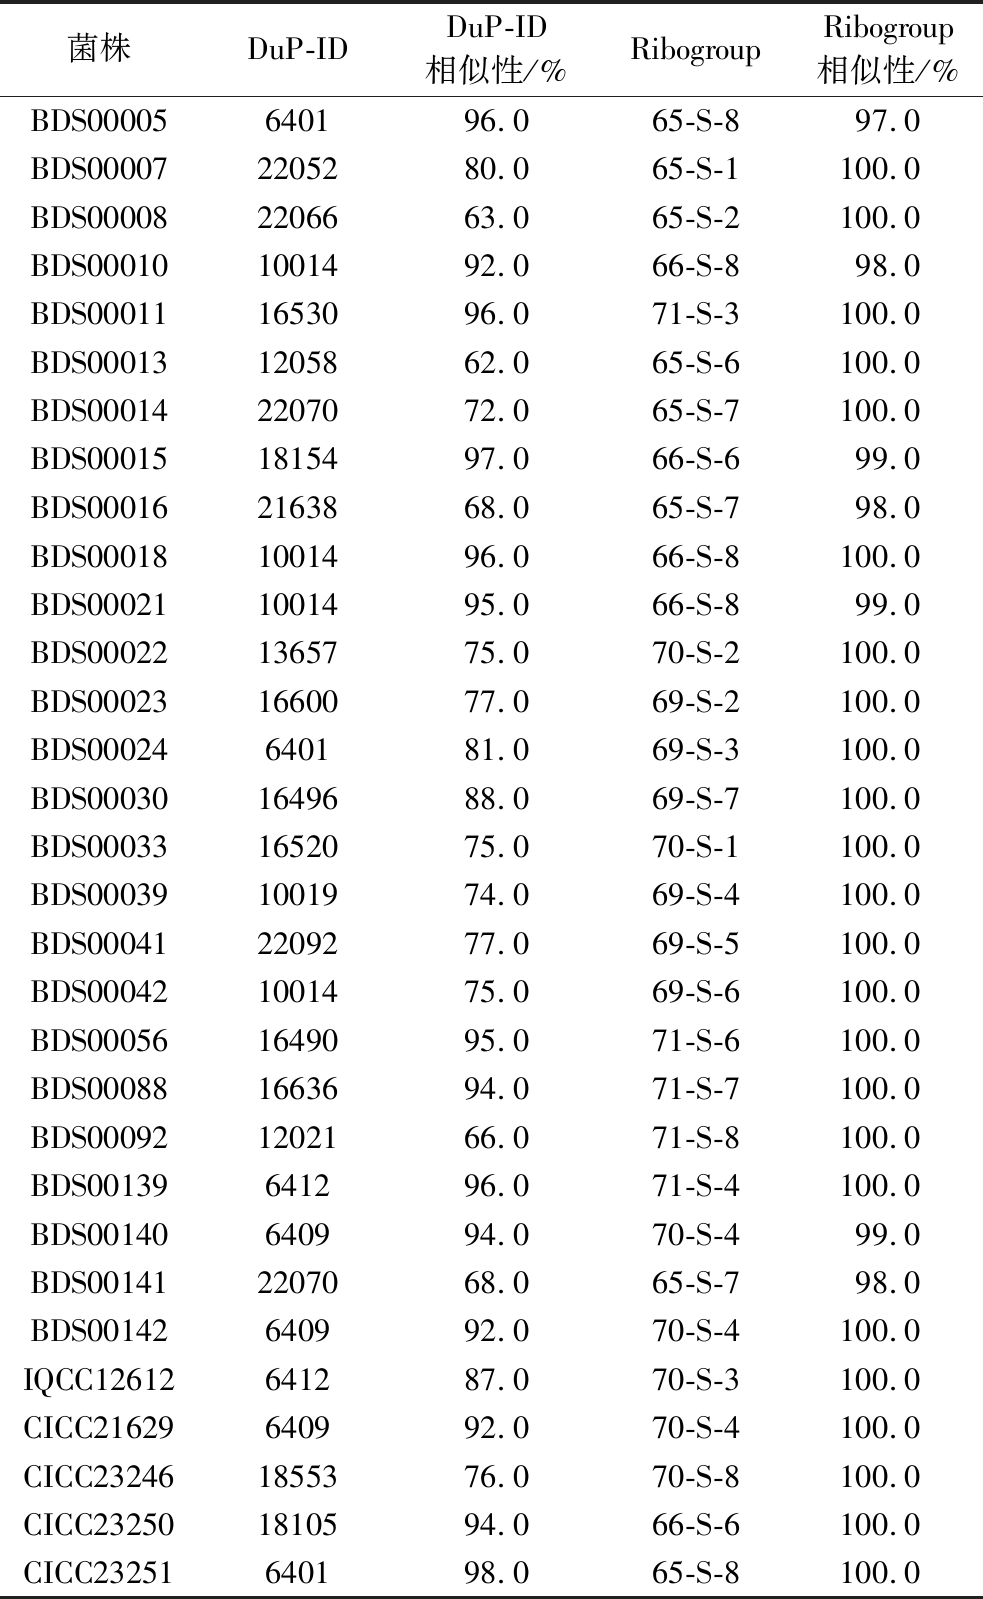
菌株DuP-IDDuP-ID相似性/%RibogroupRibogroup相似性/%BDS00005640196.065-S-897.0BDS000072205280.065-S-1100.0BDS000082206663.065-S-2100.0BDS000101001492.066-S-898.0BDS000111653096.071-S-3100.0BDS000131205862.065-S-6100.0BDS000142207072.065-S-7100.0BDS000151815497.066-S-699.0BDS000162163868.065-S-798.0BDS000181001496.066-S-8100.0BDS000211001495.066-S-899.0BDS000221365775.070-S-2100.0BDS000231660077.069-S-2100.0BDS00024640181.069-S-3100.0BDS000301649688.069-S-7100.0BDS000331652075.070-S-1100.0BDS000391001974.069-S-4100.0BDS000412209277.069-S-5100.0BDS000421001475.069-S-6100.0BDS000561649095.071-S-6100.0BDS000881663694.071-S-7100.0BDS000921202166.071-S-8100.0BDS00139641296.071-S-4100.0BDS00140640994.070-S-499.0BDS001412207068.065-S-798.0BDS00142640992.070-S-4100.0IQCC12612641287.070-S-3100.0CICC21629640992.070-S-4100.0CICC232461855376.070-S-8100.0CICC232501810594.066-S-6100.0CICC23251640198.065-S-8100.0
各个核糖型中菌株数量及其蛋白水解情况如表6所示。其中65-S-7、65-S-8、66-S-6、66-S-8和70-S-4是31株假单胞菌中的主要核糖型(每型菌株数量≥2)。从蛋白水解表型来看,上述5种主要核糖型内的菌株均呈现较一致的蛋白水解能力趋势。与Dogen等[17]的报道相似,假单胞菌分离株的蛋白水解能力与核糖型之间可能存在一定对应关系。在本研究条件下,65-S-7、65-S-8、66-S-6和66-S-8这4个核糖型所对应菌株多表现为中高蛋白水解活性,提示其可能具有较高腐败风险,值得在后续扩大样本研究中进一步验证。
表6 不同核糖型假单胞菌的数量及产蛋白酶情况分布
Table 6 Distribution of quantity and protease production among Pseudomonas isolates with different ribotypes
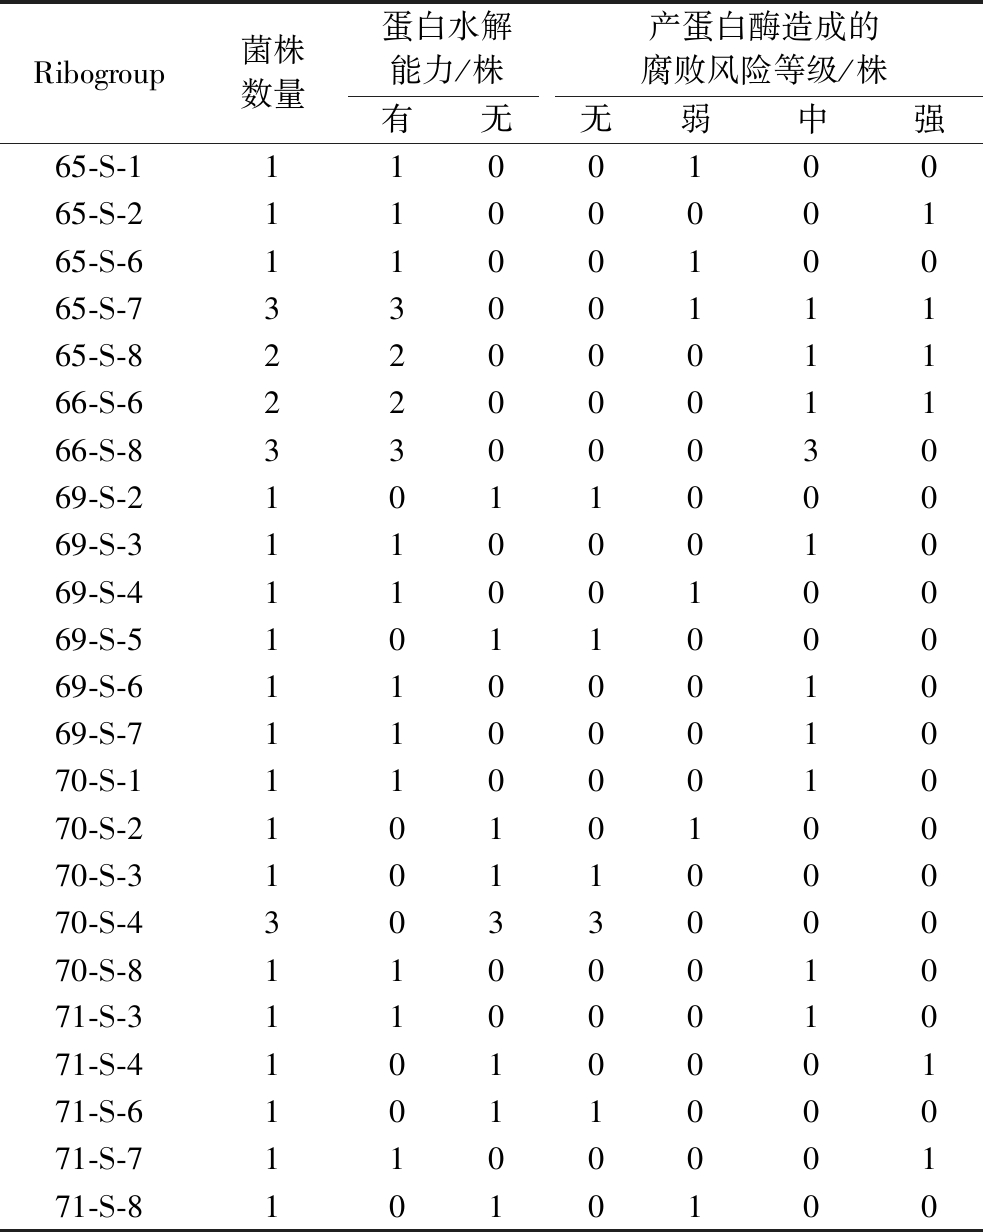
Ribogroup菌株数量蛋白水解能力/株产蛋白酶造成的腐败风险等级/株有无无弱中强65-S-1110010065-S-2110000165-S-6110010065-S-7330011165-S-8220001166-S-6220001166-S-8330003069-S-2101100069-S-3110001069-S-4110010069-S-5101100069-S-6110001069-S-7110001070-S-1110001070-S-2101010070-S-3101100070-S-4303300070-S-8110001071-S-3110001071-S-4101000171-S-6101100071-S-7110000171-S-81010100
早期研究已证实,核糖体分型在区分具有不同腐败潜力的假单胞菌方面具有重要价值[18]。基于该技术对31株假单胞菌构建的图谱相似性聚类树如图4所示。被鉴定为荧光假单胞菌的BDS00010、BDS00018和BDS00021菌株属于同一核糖型(表5),在聚类树上显示出较高相似性;此外,部分与标准菌株归为同一核糖型的分离株在聚类树上也呈现紧密聚类,如BDS00005与CICC23251的聚类相似性为96.4%,BDS00015与CICC23250的聚类相似性高达99.2%。以上结果表明,核糖体分型能够较好地区分核糖型图谱相近的菌株,并在一定程度上反映其遗传相关性[32]。
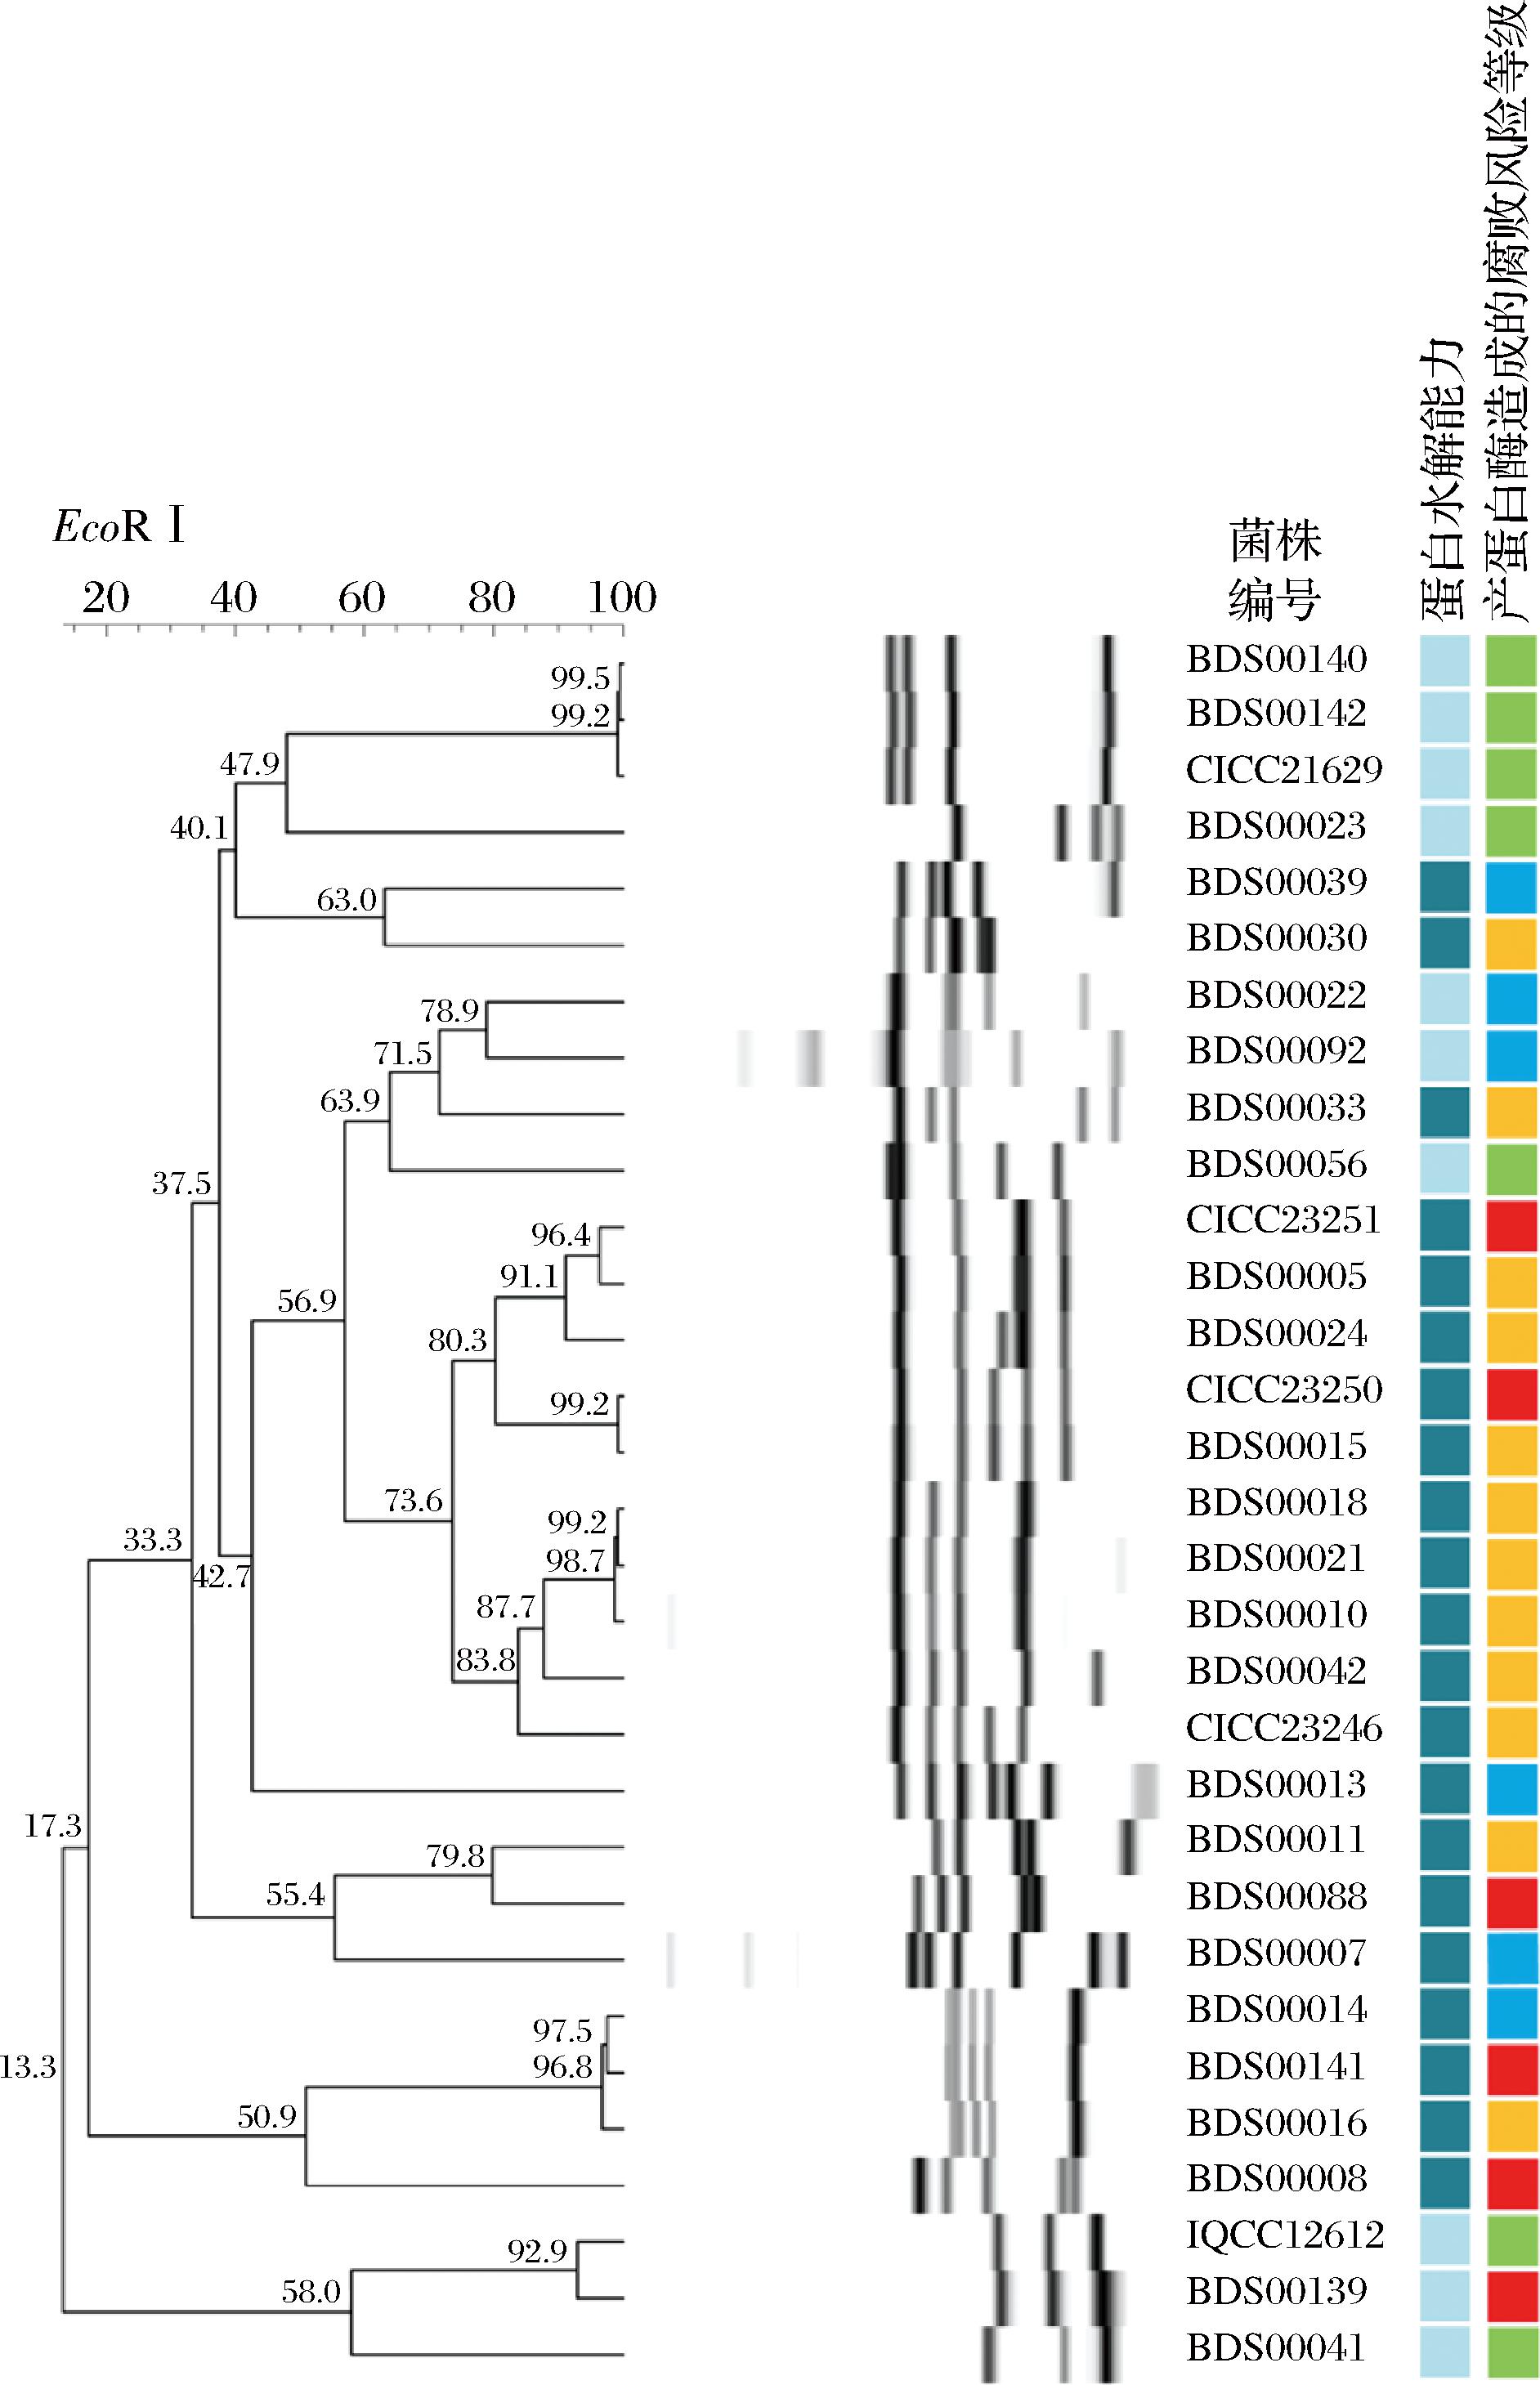
图4 基于核糖体分型指纹图谱的31株菌株聚类结果
Fig.4 Clustering results of 31 strains based on the ribotyping fingerprinting
结合表型分布可见,核糖体分型聚类结果与菌株的蛋白水解表型及致腐风险等级呈现出较明显的聚集分布特征。在相似度较高的分支内,菌株的表型特征表现出相对更高的一致性。例如,图谱中部的较大聚类簇(从BDS00033至BDS00088所在的分支)集中了大量蛋白水解阳性(深蓝色)且致腐风险为中高等级(橙黄/红色)的菌株;而图谱上方和下方的个别特定分支则主要聚集了蛋白水解阴性(浅蓝色)及无风险(绿色)的菌株。此外,所有经核糖体分型鉴定为荧光假单胞菌的菌株基本上都表现出蛋白水解活性,这与既往研究关于该菌种常具有较稳定蛋白水解表型的结论基本一致[33-34];荧光假单胞菌聚类分支内的菌株的蛋白水解能力总体呈现较一致趋势。这表明,在本研究样本范围内,相比16S rRNA基因序列分析,核糖体分型的图谱聚类特征与假单胞菌的核心腐败表型分布具有相对较好的对应关系。
2.4.3 MLST-like分型聚类结果与蛋白水解表型分布的一致性分析
基于看家基因(gltA、gyrB、ileS、acnB、recA、rpoB、rpoD)及蛋白酶相关功能基因(aprD、aprE、aprF)构建的假单胞菌MLST-like聚类树及蛋白水解表型对应关系如图5所示。相比前2种分型方法,菌株在MLST-like聚类树上的分布情况与其产蛋白酶腐败风险表型表现出一致性更高的分布趋势,具有相近腐败风险的菌株在树中聚集分布。同时可见,部分分支内仍存在不同风险等级菌株相互穿插的情况,同一遗传分支中可同时包含腐败能力存在差异的菌株,并非完全按照表型区分。上述结果提示,由看家基因与蛋白酶基因共同构成的分子标记组合,能够在更大程度上反映菌株产蛋白酶表型的分化趋势,反映出遗传背景差异与表型分化之间存在对应关系。但表型分布并未与遗传聚类形成完全对应,表明单一聚类分析难以对所有菌株的腐败风险等级进行精准区分,表型表达可能还受基因表达调控、环境条件等多重因素影响[20]。在本研究的菌株范围内,基于看家基因与蛋白酶基因的联合聚类分析,可为菌株遗传分型及腐败表型初步判断提供参考。
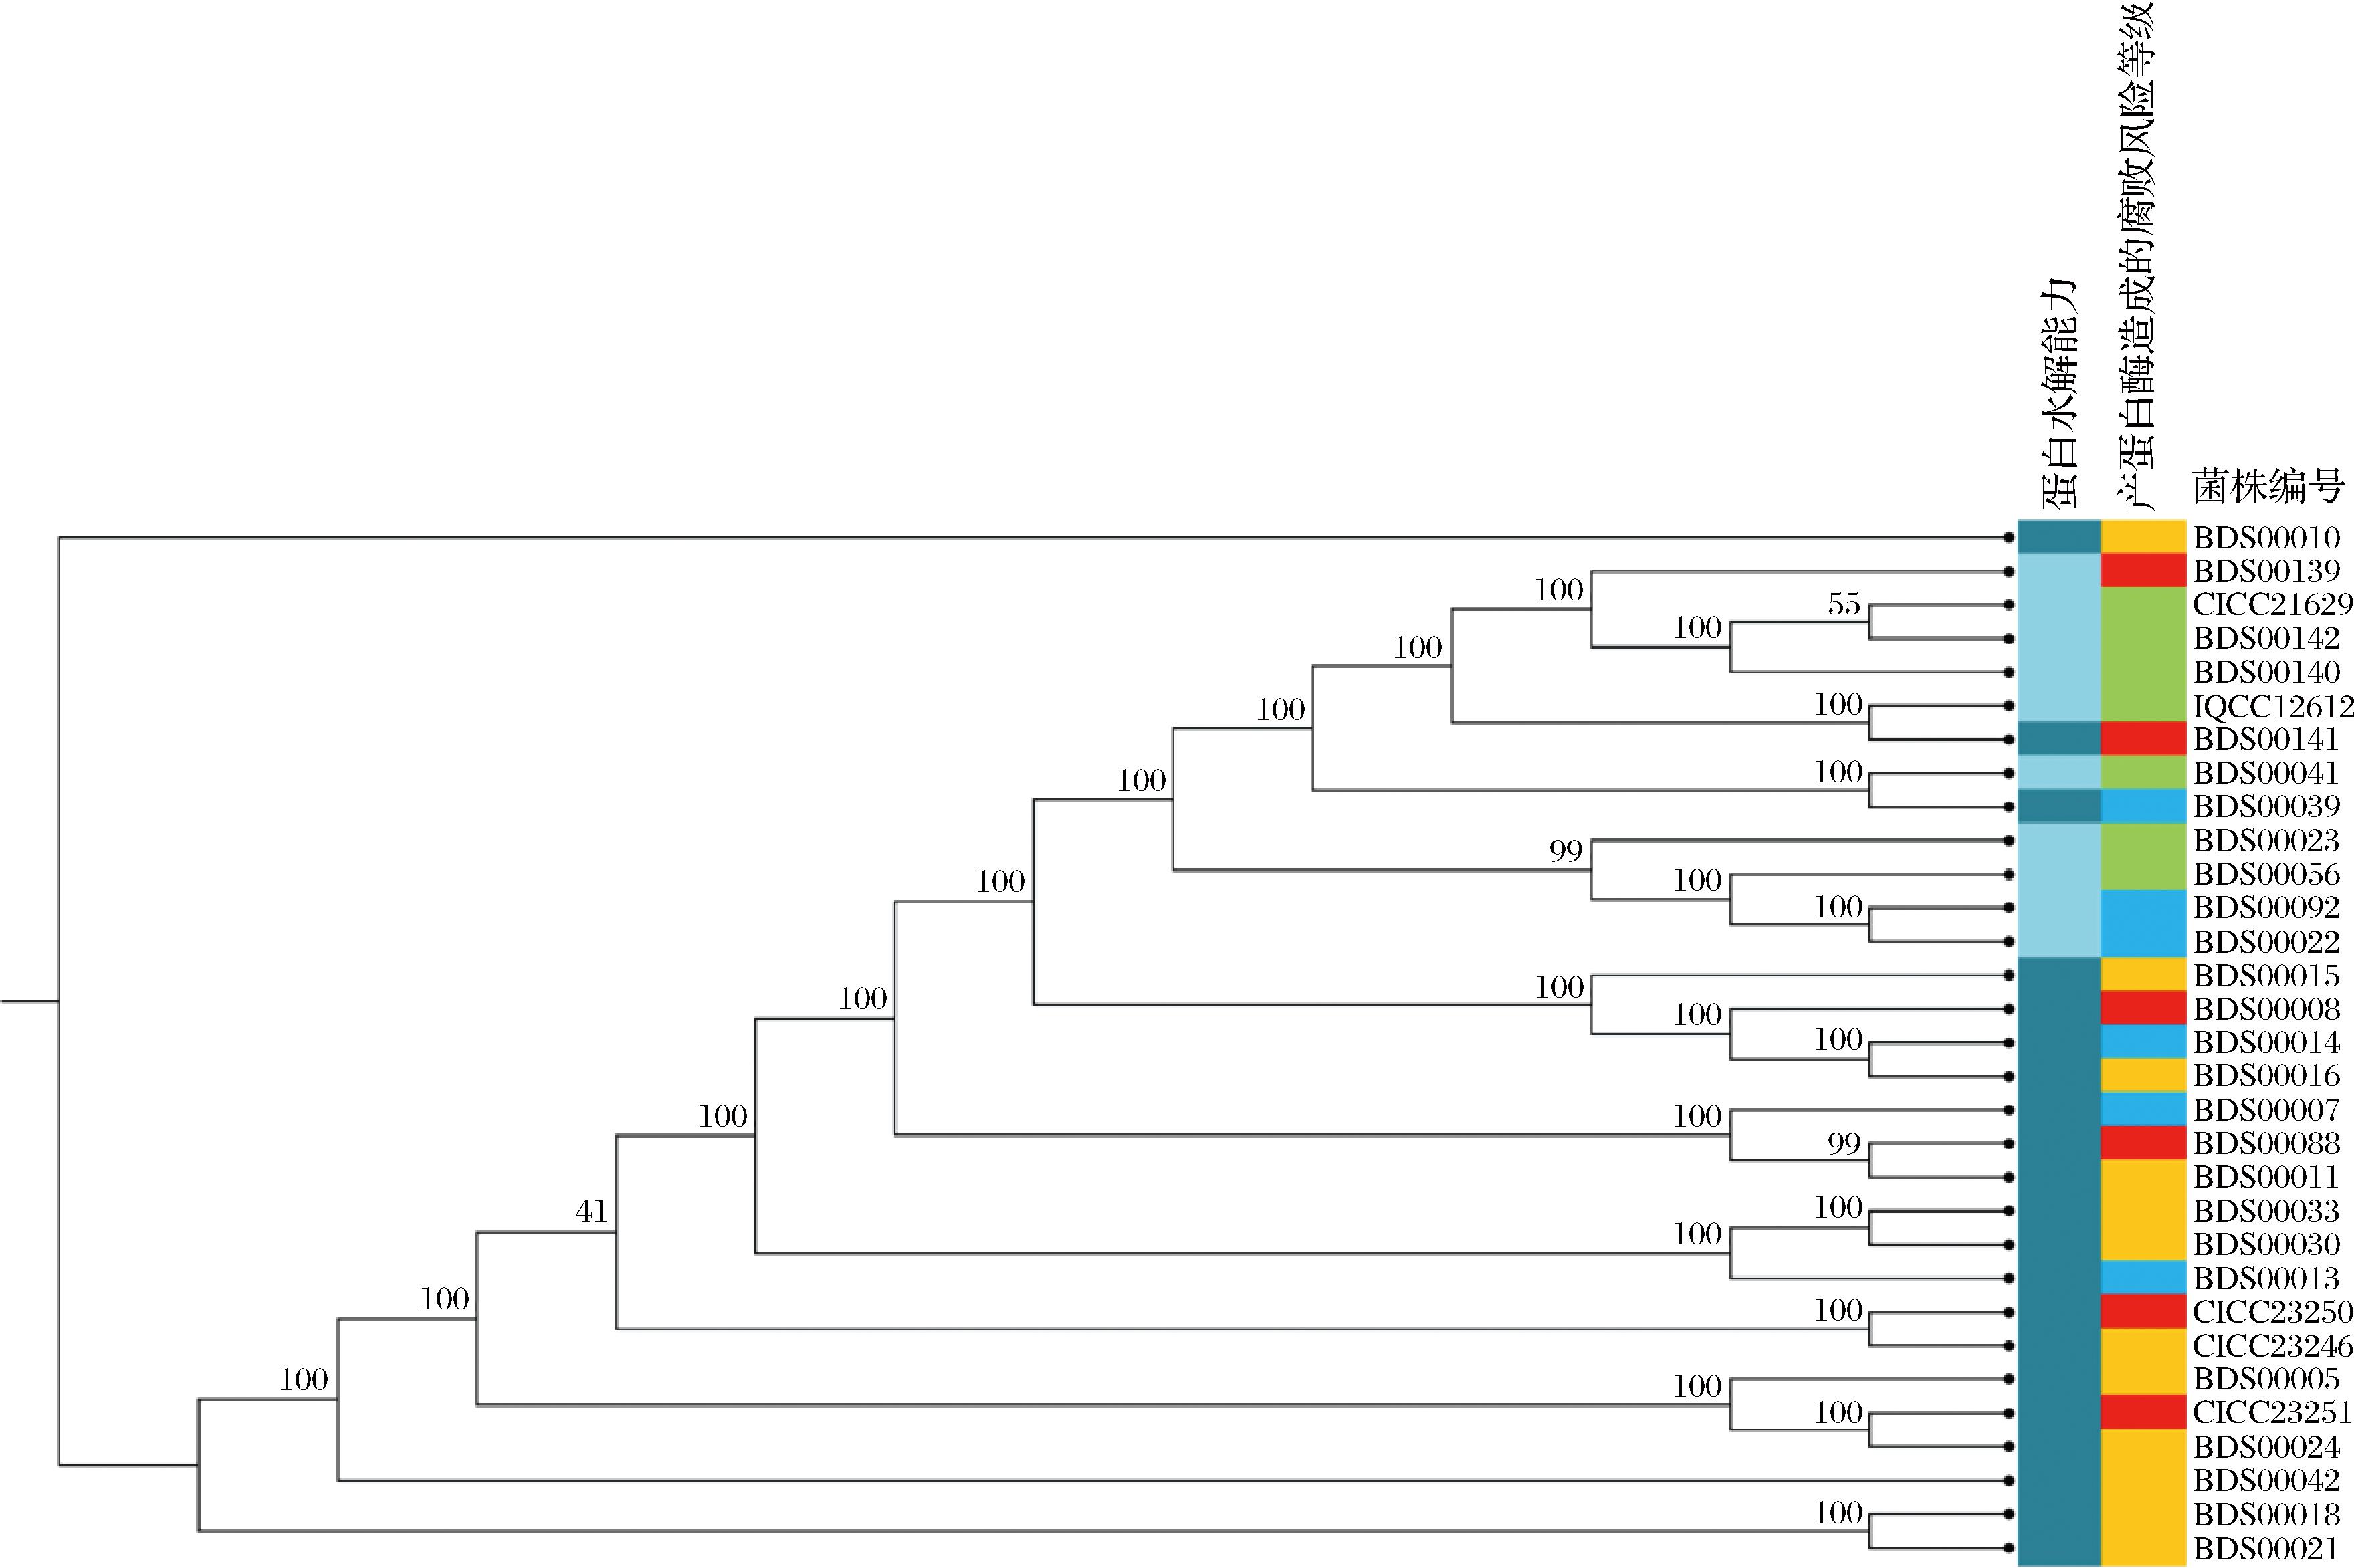
图5 基于MLST-like分型的31株菌株聚类结果
Fig.5 Clustering results of 31 strains based on the MLST-like typing
2.4.4 16S rRNA三种分型方法与蛋白水解表型分布一致性的比较
通过对比图3、图4和图5的聚类结果可知,在反映生牛乳源假单胞菌蛋白水解表型分布方面,16S rRNA基因序列分析的结果主要反映属水平的聚类趋势,与蛋白水解表型的一致性相对较弱;核糖体分型本质上反映的是遗传图谱相似菌群间表型特征的聚集效应,虽在较大部分末端小分支中表现出一定的表型聚集现象,但整体一致性仍有限,尚不能据此直接解释致腐表型差异的分子机制。相较之下,基于7个看家基因和3个蛋白酶相关基因建立的MLST-like分型与蛋白水解能力及蛋白水解致腐风险分级的对应关系最为清晰,提示其对蛋白水解相关表型具有更好的解释能力,但仍能看到一些同分支内的菌株风险等级不完全一致,说明蛋白水解致腐风险除了受这10个基因位点影响外,还可能受调控网络、表达水平、分泌效率、其他功能基因或环境适应性影响。总体上,3种分型与“蛋白水解阴阳性”的一致性均高于与“蛋白水解致腐风险分级”的一致性。因此,在实际的腐败风险筛查工作中,可将3种方法相结合使用:首先利用16S rRNA基因序列分析技术进行快速属水平鉴定,明确样品中主要腐败相关菌属的组成特征,一定程度上初筛蛋白水解阳性菌株;然后针对目标菌属采用核糖体分型技术进行种水平的进一步区分,进而辅助预判其蛋白水解相关腐败风险;还可再进一步采用基于看家基因和蛋白酶相关基因的MLST-like分型,以获得与蛋白水解表型更清晰的对应关系,为后续质量安全精细化控制提供依据。
3 结论
本研究以26株生牛乳源分离株为主,结合5株标准菌株,对假单胞菌的蛋白水解表型及其分子分型进行了系统分析。结果表明,31株假单胞菌中,67.7%(21株)表现为蛋白水解阳性。对这31株菌株在实验条件下产蛋白酶造成的腐败风险评估显示:中风险菌株占比最高(12株,38.7%),低风险和高风险各6株(各占19.4%),无风险菌株7株(占22.5%),荧光假单胞菌是本研究中最典型的高蛋白水解活性相关菌种。与16S rRNA基因序列分析相比,核糖体分型在本研究菌株中表现出更高的种水平分辨率,其聚类结果与蛋白水解表型分布呈现出更高的一致性。需要指出的是,该一致性主要反映了不同菌种间表型差异的聚集效应,尚不能说明分型结果能够直接揭示菌株表型差异的分子机制。MLST-like分型与蛋白水解能力及蛋白水解致腐风险分级的对应关系在3种分型方法中最为清晰,提示其对蛋白水解相关表型具有更好的解释能力。因此,在本研究条件下,基于看家基因与蛋白酶基因的MLST-like分型,可更有效地反映菌株间蛋白水解表型的分化趋势。3种方法各有侧重且互为补充,灵活综合运用3种方法,能够在不同层次上反映乳源假单胞菌的蛋白水解腐败风险特征,为大批量菌株的分层鉴定和蛋白水解致腐风险识别提供方法学参考。未来还可进一步结合全基因组测序、转录组学等多组学技术,解析假单胞菌蛋白水解能力的分子调控机制,并通过更多关键功能基因的筛查实现更精准的表型-基因型关联分析;另一方面还可以拓展菌株来源和样本量,纳入涉及更大菌种范围的菌株,构建更全面的假单胞菌腐败风险评估体系,为牛乳中腐败菌污染风险防控及乳制品货架期延长提供科学依据。
[1] Liang L J, Wang P, Wang Z R, et al. Species-level source tracing of psychrotrophic bacteria contamination in raw milk from large-scale farms via SMRT sequencing[J]. Food Research International, 2025, 203:115840.
[2] Saha S, Majumder R, Rout P, et al. Unveiling the significance of psychrotrophic bacteria in milk and milk product spoilage-A review[J]. The Microbe, 2024, 2:100034.
[3] de Souza Correia S, Bruzaroski S R, de Araújo K E, et al. The influence of the population of psychrotrophs in raw milk on the characteristics of natural yogurt[J]. International Dairy Journal, 2024, 157:106003.
[4] Cheng J Q, Gao Y, Liu J X, et al. Effect of heat-resistant protease of Pseudomonas fluorescens on the quality of liquid milk: A physicochemical and proteomic perspective[J]. Journal of Dairy Science, 2026, 109(2):1052-1064.
[5] Chang G H, Li Q H, Wang T, et al. Characterization of Pseudomonas spp. Contamination and in situ spoilage potential in pasteurized milk production process[J]. Food Research International, 2024, 188:114463.
[6] Aouadhi C, Tbarki R, Boukari W, et al. Impact of psychrotrophic bacteria in raw milk on the quality and stability of UHT milk in Tunisia[J]. International Dairy Journal, 2025, 167:106262.
[7]  vila M, Sánchez C, Calzada J, et al. Diversity and spoilage potential of Pseudomonas spp. From Spanish milk and dairy products: Impact on fresh cheese and milk quality[J]. Food Research International, 2025, 202:115700.
[8] Aguilera-Toro M, Kragh M L, Thomasen A V, et al. Proteolytic activity and heat resistance of the protease AprX from Pseudomonas in relation to genotypic characteristics[J]. International Journal of Food Microbiology, 2023, 391:110147.
[9] Huang Y Y, Flint S H, Yu S B, et al. Phenotypic properties and genotyping analysis of Bacillus cereus group isolates from dairy and potato products[J]. LWT, 2021, 140:110853.
[10] Yan M H, Luo L W, Li D D, et al. Biofilm formation risk assessment for psychrotrophic Pseudomonas in raw milk by MALDI-TOF mass spectrometry[J]. LWT, 2023, 176:114508.
[11] Hosseini H, Hippe B, Denner E, et al. Isolation, identification and monitoring of contaminant bacteria in Iranian Kefir type drink by 16S rDNA sequencing[J]. Food Control, 2012, 25(2):784-788.
[12] Ravaioli S, Campoccia D, Ruppitsch W, et al. Comparison of automated ribotyping, spa typing, and MLST in 108 clinical isolates of Staphylococcus aureus from orthopedic infections[J]. International Journal of Molecular Sciences, 2022, 23(3):1660.
[13] Schumann P, Pukall R. The discriminatory power of ribotyping as automatable technique for differentiation of bacteria[J]. Systematic and Applied Microbiology, 2013, 36(6):369-375.
[14] 王玢, 黄演君, 潘子康, 等. 中药片剂微生物污染鉴定和溯源分析及风险评价[J]. 中南药学, 2024, 22(5):1345-1349.Wang F, Huang Y J, Pan Z K, et al. Identification and traceability of microbial pollution in traditional Chinese medicine tablets and its risk evaluation[J]. Central South Pharmacy, 2024, 22(5):1345-1349.
[15] Andollina A, De Cesare A, Bertoni G, et al. Identification and genetic characterisation of orthopaedic Staphylococcus isolates collected in Italy by automated EcoRI ribotyping[J]. FEMS Microbiology Letters, 2004, 234(2):275-280.
[16] Wiedmann M, Weilmeier D, Dineen S S, et al. Molecular and phenotypic characterization of Pseudomonas spp. isolated from milk[J]. Applied and Environmental Microbiology, 2000, 66(5):2085-2095.
[17] Dogan B, Boor K J. Genetic diversity and spoilage potentials among Pseudomonas spp. Isolated from fluid milk products and dairy processing plants[J]. Applied and Environmental Microbiology, 2003, 69(1):130-138.
[18] Maiden M C J, van Rensburg M J J, Bray J E, et al. MLST revisited: The gene-by-gene approach to bacterial genomics[J]. Nature Reviews Microbiology, 2013, 11(10):728-736.
[19] Narvhus J A, Nilsen Bækkelund O, Tidemann E M, et al. Isolates of Pseudomonas spp. from cold-stored raw milk show variation in proteolytic and lipolytic properties[J]. International Dairy Journal, 2021, 123:105049.
[20] Yuan L, Sadiq F A, Liu T J, et al. Spoilage potential of psychrotrophic bacteria isolated from raw milk and the thermo-stability of their enzymes[J]. Journal of Zhejiang University: Science B, 2018, 19(8):630-642.
[21] Hamdan N H, Mohamed Rehan M, Ogita S, et al. Novel sustainable bio-fertilizer formulated with mangrove-associated bacteria enhances duckweed growth and protein content[J]. Pertanika Journal of Tropical Agricultural Science, 2024, 47(3):819-841.
[22] Hall B G. Building phylogenetic trees from molecular data with MEGA[J]. Molecular Biology and Evolution, 2013, 30(5):1229-1235.
[23] 崔方超, 王芸婷, 王当丰, 等. 外源AHLs培养下荧光假单胞菌qPCR内参基因的筛选[J]. 中国食品学报, 2024, 24(2):32-42.Cui F C, Wang Y T, Wang D F, et al. Screening of reference genes for qPCR of Pseudomonas fluorescens under exogenous AHLs culture[J]. Journal of Chinese Institute of Food Science and Technology, 2024, 24(2):32-42.
[24] Chen W J, Kuo T Y, Chen C Y, et al. Whole genome sequencing and Tn5-insertion mutagenesis of Pseudomonas taiwanensis CMS to probe its antagonistic activity against rice bacterial blight disease[J]. International Journal of Molecular Sciences, 2020, 21(22):8639.
[25] 胡少震, 代良超, 张书文, 等. 原料乳和牧场环境中嗜冷菌多样性及蛋白酶水解特性研究[J]. 食品与发酵工业, 2024, 50(8):24-30.Hu S Z, Dai L C, Zhang S W, et al. Diversity and protease hydrolysis characteristics of psychrophilic in raw milk and pasture environment[J]. Food and Fermentation Industries, 2024, 50(8):24-30.
[26] Zarei M, Yousefvand A, Maktabi S, et al. Identification, phylogenetic characterisation and proteolytic activity quantification of high biofilm-forming Pseudomonas fluorescens group bacterial strains isolated from cold raw milk[J]. International Dairy Journal, 2020, 109:104787.
[27] Lalucat J, Mulet M, Gomila M, et al. Genomics in bacterial taxonomy: Impact on the genus Pseudomonas[J]. Genes, 2020, 11(2):139.
[28] Du B Y, Meng L, Liu H M, et al. Diversity and proteolytic activity of Pseudomonas species isolated from raw cow milk samples across China[J]. Science of the Total Environment, 2022, 838:156382.
[29] 于淑池, 邢文君, 冯紫蓝, 等. 基于群体感应研究苦丁茶多酚对荧光假单胞菌腐败特性的抑制作用[J]. 食品工业科技, 2021, 42(21):148-157.Yu S C, Xing W J, Feng Z L, et al. Inhibition of Kuding tea polyphenols against the spoilage characteristics of Pseudomonas fluorescens based on quorum sensing[J]. Science and Technology of Food Industry, 2021, 42(21):148-157.
[30] García-Valdés E, Lalucat J. Pseudomonas: Molecular phylogeny and current taxonomy[M]. Pseudomonas: Molecular and Applied Biology. Cham: Springer, 2016:1-23.
[31] Gendel S M, Ulaszek J. Ribotype analysis of strain distribution in Listeria monocytogenes[J]. Journal of Food Protection, 2000, 63(2):179-185.
[32] 刘继超, 姜铁民, 姜阿赤, 等. 应用全自动核糖体RNA基因指纹技术快速鉴定细菌菌种[J]. 食品工业科技, 2013, 34(13):170-172; 177.Liu J C, Jiang T M, Jiang A C, et al. Rapid bacterial identification with Dupont Qualicon RiboPrinter system[J]. Science and Technology of Food Industry, 2013, 34(13):170-172; 177.
[33] Longhi R, Correia S S, Bruzaroski S R, et al. Pseudomonas fluorescens and Pseudomonas putida from refrigerated raw milk: Genetic diversity and lipoproteolytic activity[J]. The Journal of Dairy Research, 2022:1-4.
[34] Wang Y, Sun J L, Deng Y W, et al. Whey protein influences the production and activity of extracellular protease from Pseudomonas fluorescens W3[J]. LWT, 2022, 154:112865.