功能性脂肪酸、类胡萝卜素及甾醇等高价值配料的市场需求日益增长[1-3],而传统农业生产面临耕地限制、季节波动及可持续性差等瓶颈。因此,微生物发酵作为开发上述高价值配料的关键替代技术,提供了绿色、安全且稳健的生产平台[4]。然而,微生物功能性配料的产业化仍受三大核心瓶颈制约:生产层面,代谢竞争与产物细胞毒性限制了产率与合成通量[5];产品层面,类胡萝卜素等亲脂性物质易氧化降解,影响货架期与生物功效;成本层面,产物胞内富集导致回收依赖复杂的细胞破碎与提取工艺,显著增加了下游加工成本[6]。
为解决上述瓶颈,亟需将工程化策略从代谢通路优化转向细胞器层面,即将脂滴从被动储存库改造为多功能动态调控枢纽[7]。脂滴是细胞内由中性脂类核心和单层磷脂膜组成的动态细胞器,兼具储存疏水性物质与调控脂质代谢、信号传导及产物合成区室化等多重功能。基于这一特性,通过将合成途径锚定于脂滴,可构建“合成-储存”区室以隔离毒性[5];构建脂滴储存系统以提升产品稳定性[2];进一步重构脂质代谢途径则可实现内容物的胞外分泌并简化下游工艺[8]。
当前研究多聚焦于脂滴单一功能优化,缺乏系统性框架,而产油微生物领域正从关注“储油能力”转向“功能实现”[5]。鉴于此,本综述的独特贡献在于,首次构建一个以脂滴为核心,集“储存、稳定、释放与分泌”多功能于一体的工程蓝图。本文旨在综述相关关键策略与使能技术,为功能性食品配料的生物制造新范式提供理论与技术路线图(图1)。
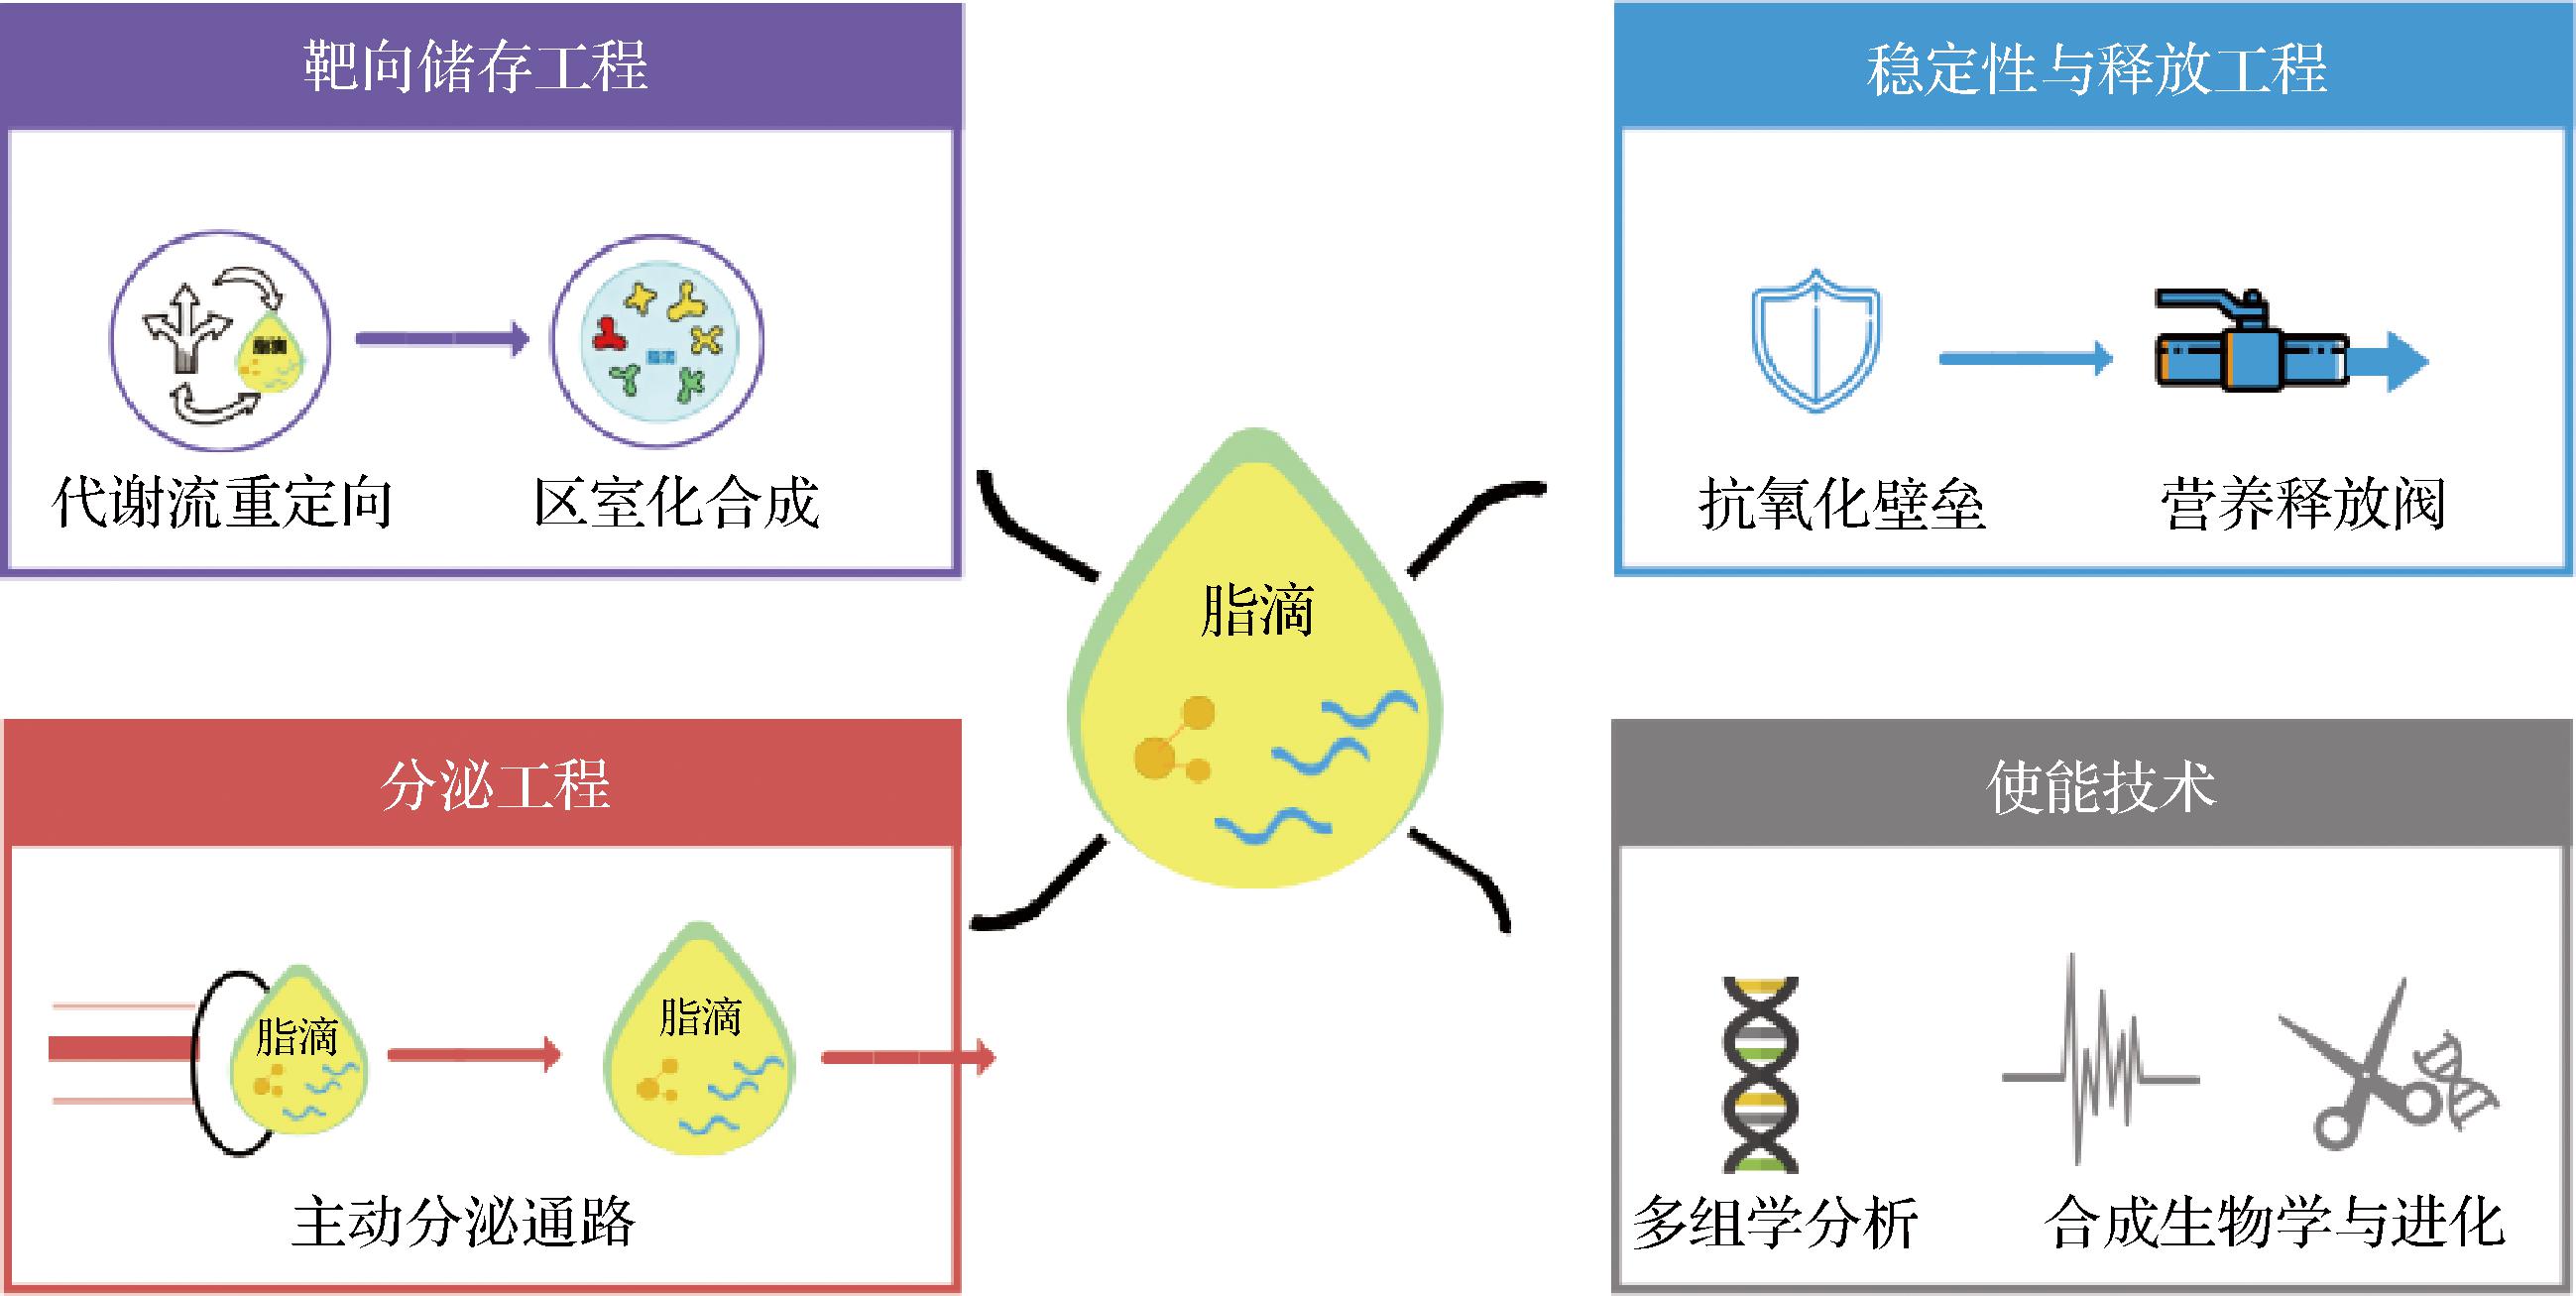
图1 以脂滴为核心的功能性食品配料工程策略概览
Fig.1 An overview of lipid droplet-based engineering strategies for producing functional food ingredients
1 产油微生物功能性脂质的分子机制:合成、储存与周转
1.1 从诞生到降解:脂滴的生命周期与调控机制
产油微生物的脂滴生命周期始于其在内质网的形成(图2),通过液-液相分离机制聚集新生脂质,最终出芽形成磷脂单层包裹的结构[9]。
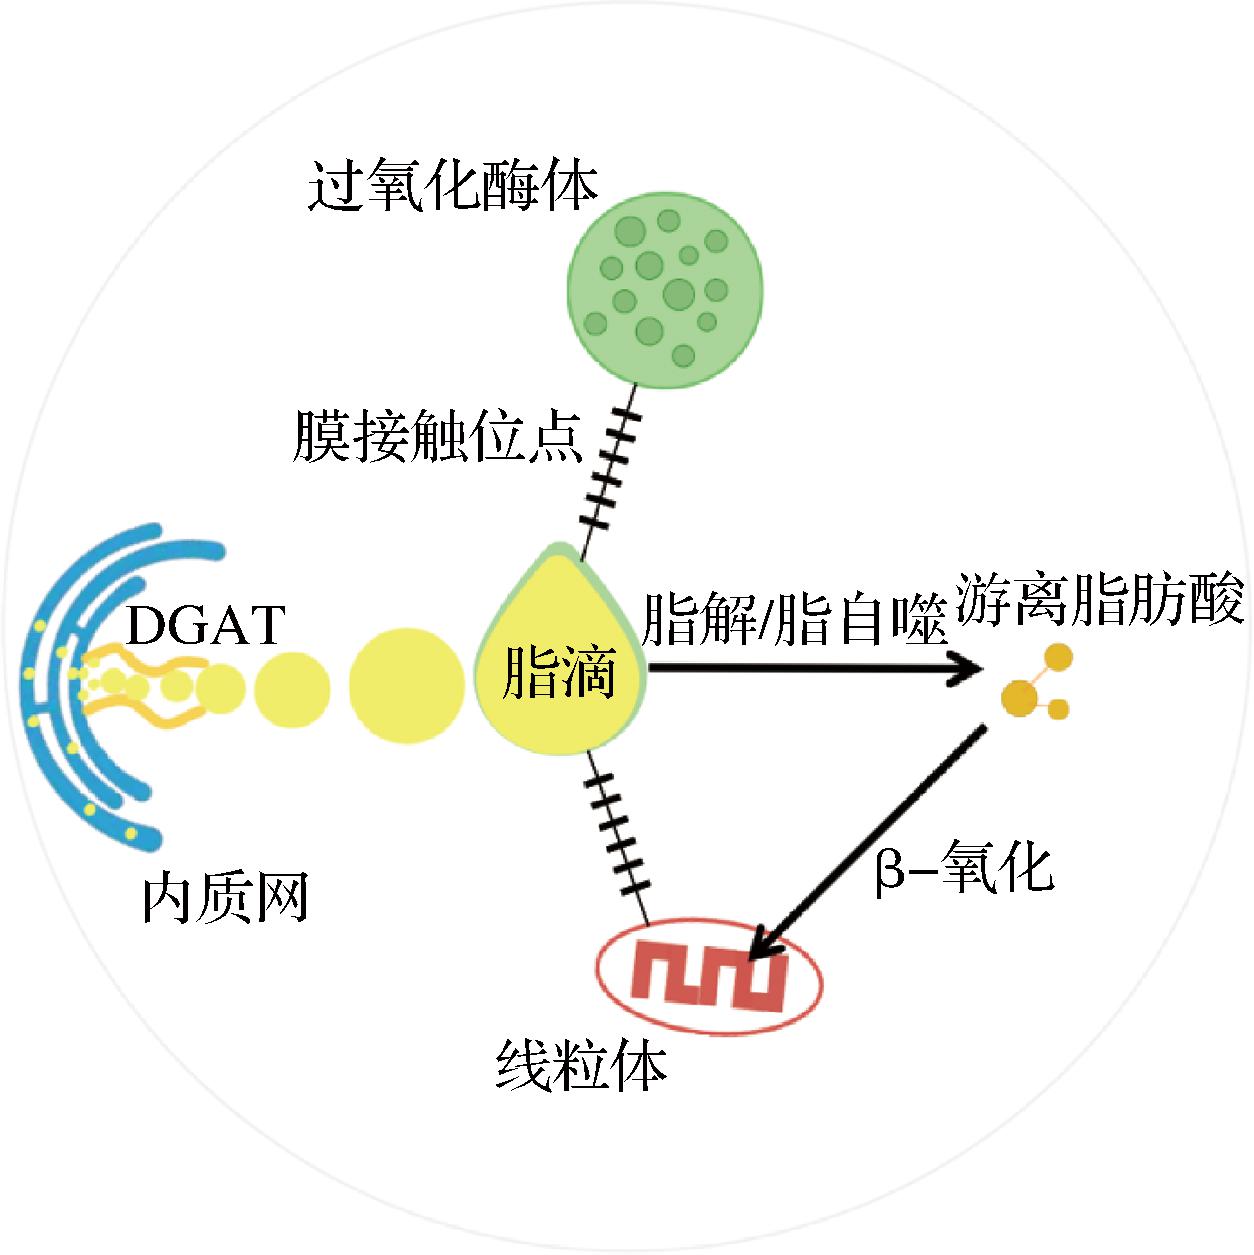
图2 脂滴的动态生命周期与细胞器协同网络
Fig.2 The dynamic life cycle of lipid droplets and their interaction network with other organelles
脂滴的生长由核心合成酶二酰甘油酰基转移酶(diacylglycerol acyltransferase,DGAT)驱动,其活性决定合成速率,且具高度功能特异性,如裂殖壶菌中不同DGAT亚型分别负责虾青素酯、甘油三酯的合成[10]。生长原料除从头合成外,还源于细胞器降解重塑,如氮饥饿诱导的叶绿体自噬可为微拟球藻脂滴形成提供膜脂[11]。此过程受多层次调控:上游细胞信号(如G1期停滞[12])通过转录程序[13]传递,并由脂滴表面蛋白调控形态,后者可抑制脂滴融合,使其平均直径从1.19 μm减小至0.46 μm[14]。最终体现为“步进式”生长模式,如在氮饥饿的三角褐指藻中,脂滴在第一亚群达到0.675 μm的尺寸上限后,并非融合扩大,而是依次形成半径分别为0.195 μm、0.385 μm的第二、第三亚群,以在有限细胞空间内实现最大化脂质储存[15]。
脂滴降解主要通过脂解与脂自噬2条途径进行,以实现脂质周转。脂解依赖脂滴表面的脂肪酶催化甘油三酯水解,其活性受亚细胞定位与翻译后修饰的精密调控[16]。脂自噬则提供批量降解机制,其分子机制存在物种差异,如在微拟球藻中由脂滴表面蛋白和自噬相关蛋白互作介导[17],而在硅藻中则观察到液泡与脂滴直接融合[18]。2条途径均释放脂肪酸以供β-氧化,其对饥饿期细胞存活至关重要[19]。
脂滴生命周期受整合外部环境信号与内部生理状态的复杂网络调控,体现了代谢适应性[13]。外部营养胁迫(如氮磷缺乏)是启动脂质积累的关键触发点[20-21],信号通过磷饥饿信号通路等介导,上调自噬及脂质转移基因,将资源重分配至脂质合成[20]。此过程伴随分解代谢的主动抑制,如氮饥饿时线粒体降解和自噬受抑,以保证脂质净积累[21]。然而,该调控网络具有高度的条件特异性[22]和物种差异性[23],其系统层面的全局机制认知有待多组学技术整合解析[24]。
1.2 脂滴作为细胞器协同网络的枢纽,调控营养代谢与产品品质
脂滴是细胞代谢的动态调控枢纽[7],其功能依赖于内质网、过氧化物酶体等细胞器形成的物理互作界面,以协同调控代谢通量[25]。该互作网络以物理连接为基础:通过膜接触位点与质体关联[9],或在胁迫下(如氮饥饿)与线粒体形成紧密接触[21]。尤其在多种酵母中,过氧化物酶体充当关键连接点,其与脂滴、质膜的广泛膜接触位点为脂质运输提供了途径[26](图2-a)。因此,脂滴并非孤立单元,而是通过物理连接整合于全局细胞代谢网络中的动态枢纽。
细胞器协同网络在应激适应与代谢物合成中发挥双重功能。一方面,脂滴积累作为保护性应激反应可提升胁迫生存率[27],其前体物和能量源于胁迫下网络协同重塑,如微拟球藻中叶绿体自噬及总蛋白显著下降等过程[11]。另一方面,该生存机制可被工程化用于提升工业菌株的生产效率与稳健性,例如强化脂滴合成可将解脂耶氏酵母在高盐胁迫下的烷烃降解率提升至77.2%[28]。然而,此策略存在适应性代价,如过表达过氧化物酶体合成基因虽使斜生栅藻脂质产量提升2~3倍,却削弱了其耐盐性[22]。尽管如此,通过多细胞器组合修饰已成功将角鲨烯产量提升3.4倍[29]。综上,细胞器协同网络耦合了生存与生产,为构建高性能工业菌株提供了理论依据与工程范式。
2 通过靶向储存工程,实现食品功能因子的高效细胞内富集
2.1 通过代谢流调控与细胞结构重塑,实现产量提升
代谢流重定向通过增强前体供应与抑制竞争途径提升产率。例如,上调长孢被孢霉乙酰辅酶A羧化酶(9.25倍)和脂肪酸合酶(4.37倍)基因,使油脂质量分数从30.15%增至41.69%[30];抑制竞争途径则使普通小球藻总脂积累量提升2.2倍[31]。该策略还可解耦生长与生产,使微藻突变株在氮源充足条件下脂质积累量仍为亲本的1.5~2.1倍[32],但其成效高度依赖于营养环境的精确调控[33]。
靶向强化合成终点酶,尤其是DGAT,是驱动碳流的“拉力”机制[34]。过表达DGAT可使解脂耶氏酵母角鲨烯产量达1 628.2 mg/L[35]。然而,该策略存在“生长-生产”权衡:下调圆红冬孢酵母甘油三酯合成相关基因虽减缓生长,却使甘油二酯和游离脂肪酸含量分别提升2倍、3倍,原因是甘油三酯与生长正相关,而甘油二酯与生长负相关[36]。
细胞结构重塑通过物理扩容与生理调控突破储存瓶颈。物理扩容方面,角质皮孢酵母突变株因细胞体积增大100倍,脂质产量高达55.4~58.4 g/L[37],但脂滴尺寸存在物理上限[15]。生理调控则通过干预细胞周期(如诱导合成前期停滞)增强脂质积累,但需平衡生长与生产[12]。
协同提升代谢通量与储存容量是突破产量瓶颈的前沿范式。例如,在酿酒酵母中同步调控脂滴生成与周转,可使总脂肪酸产量提升10.70倍[1];组合6种改造可将非产油酵母的甘油三酯含量提升至65%[38]。储存容量是高通量的前提,扩大脂滴可使角鲨烯产量增加42.2%[35]。更优的协同策略是通过干预靶点协同实现代谢重定向与结构优化[20]。
2.2 通过脂滴工程建立营养微囊,实现天然产物的原位合成与储存
基于脂滴天然的疏水性储存能力,可通过工程化改造将其构建为具有“营养微囊”功能的储存平台。研究证实,脂滴不仅储存甘油三酯,还富含类胡萝卜素[39]、角鲨烯[35]及甾醇酯,后者在红球菌的脂滴中占比高达69%[40]。因此,脂滴作为参与代谢与信号传导的动态细胞器,其相关基因(如脂肪酶基因)已成为调控二十碳五烯酸(eicosapentaenoic acid,EPA)等功能产物合成的关键靶点[41]。
区室化工程通过蛋白质靶向定位,将代谢途径锚定于脂滴界面,将其改造成原位合成的“生物反应器”。在解脂耶氏酵母中,将虫草素合成酶复合物定位于脂滴使产量达4 780.75 mg/L[42];多细胞器协同定位则将虾青素产量提升141倍至858 mg/L[25]。该策略的基础是可编程的酶亚细胞定位,如通过改变DGAT2C的N端结构域调整其定位,可提高甾醇产率[43],从而实现底物通道优化与代谢串扰规避[44]。
将生物合成途径区室化至脂滴的核心优势在于,通过物理隔离和优化微环境,解决了产物毒性与合成效率瓶颈。隔离方面,强化脂滴储存可缓解α-红没药烯的毒性,使其在解脂耶氏酵母中产量提高96倍至1 954.3 mg/L[5],尽管真菌可能存在不同的自我保护机制[45]。增效方面,将多步反应酶共定位于脂滴表面可形成底物通道,如在解脂耶氏酵母中生产C30类胡萝卜素时,产量达2 686.77 mg/L,突破了低底物转化率的限制[2]。
脂滴“营养微囊”策略显著拓展了微生物细胞工厂的产品谱系,可实现从天然到非天然分子的多样化生产。在解脂耶氏酵母中,该策略已成功用于合成虫草素(4 780.75 mg/L)[42]、α-红没药烯(1 954.3 mg/L)[5]、甾醇/类固醇[3]及非天然油脂[46]。此外,通过调控发酵条件可对产物谱系进行精准控制,如在圆红冬孢酵母中,不同碳源、温度、pH值可分别主导油酸、棕榈酸、硬脂酸或超长链脂肪酸的积累[47],为按需定制功能性配料提供了技术支撑。
3 产品稳定性与生物利用率的细胞内调控:脂滴的稳定性与释放调控
3.1 构筑“抗氧化壁垒”:通过结构蛋白工程提高产物稳定性与货架期
提升功能性食品配料生物利用率的核心策略,在于将内源性脂质降解途径重编程为可控的“营养释放阀”。微生物天然具备此调控机制,如微拟球藻在氮饥饿时会上调脂质代谢相关基因[48],而裂殖壶菌中也存在单甘酯脂肪酶[49]。通过基因工程改造这些酶,可实现功能性成分释放的精准调控。例如,在解脂耶氏酵母中敲除脂肪酶基因以阻止甘油三酯降解,可使EPA产量提高57%,碳转化率提高近50%(以废油为碳源)[41]。类似地,在酿酒酵母中通过多维度的酶工程策略,也实现了对脂肪酸积累的精细调控:敲除脂酰辅酶A合成酶以阻断脂肪酸的再酯化,使总脂肪酸产量较野生型(72.30 mg/L)增加1.58倍;进一步过表达脂滴降解相关脂肪酶以加速甘油三酯水解,使总脂肪酸产量提高至566.10 mg/L,较野生型提升约7.83倍[1]。然而,该策略需精确权衡细胞生理状态,如解脂耶氏酵母中麦角甾醇酯的水解与再酯化平衡,即同时影响膜稳定性与脂滴动态[50]。因此,重编程内源性脂解途径是直接在细胞层面设计配料生物利用率的前沿策略。
精准编程“营养释放阀”需采用系统调控策略,即协同调控分子开关与脂滴物理结构。工程化改造脂滴结构蛋白是调控其物理结构的关键。例如,在热带假丝酵母中异源表达脂滴蛋白可抑制脂滴融合,使其平均直径从1.19 μm降至0.46 μm[14]。然而,该策略存在“释放-储存”的权衡:在圆红冬孢酵母中,脂滴结构蛋白基因失活虽能改变脂滴形态,但会导致脂质含量下降百分比超过40%[51]。因此,整合调控释放速率的分子开关(如脂肪酶基因敲除[41])与决定储存容量的物理结构(如脂滴蛋白工程化[14]),是提升功能性成分生物利用率的系统性解决方案。
3.2 建立可调控的营养释放机制,以提高产物的生物利用率
产油微生物的脂质降解是受精密调控的动态周转系统,而非无序分解,这为工程化构建“营养释放阀”提供了理论基础。该过程受环境信号调控,例如在微拟球藻中,氮源的补充可触发甘油三酯的快速降解[17]。同时,上游信号通路对其进行重编程,如抑制解脂耶氏酵母的雷帕霉素靶蛋白信号促使碳流由脂质合成转向脂肪酸降解[52]。此外,脂质降解与下游代谢紧密偶联,裂殖壶菌中线粒体脂肪酸β-氧化的停滞会引发生长缺陷,证明其对细胞存活至关重要[19]。因此,脂质周转是由环境信号、核心通路与能量代谢精密偶联的动态系统,为设计可控的“营养释放阀”提供了干预靶点。
实现“营养释放阀”功能的核心在于对关键调控因子脂肪酶进行合成生物学编程,从而调控释放速率与产物形态。在酿酒酵母中,协同调控脂滴合成与降解(上调脂肪酶基因)可将总脂肪酸产量提升10.70倍[1],证实了调控脂滴周转是高效释放产物的有效策略,但这有赖于对脂肪酶亚细胞定位及翻译后修饰的深入理解[16]。更精细的工程化可调控释放产物的化学形态,例如在圆红冬孢酵母中,通过下调甘油三酯合成并过表达与脂滴蛋白融合的脂肪酶基因,成功将储存态的甘油三酯定向转化为甘油二酯和游离脂肪酸,含量分别提升2倍、3倍[36]。然而,此种代谢重编程伴有生长放缓等生理代价[36]。该胞内酶工程策略与体外多步酶解[6]原理相近,均旨在通过精确酶学手段打破生物区室化屏障,提升目标组分利用率。综上,对脂肪酶进行多层级工程化改造是实现“营养释放阀”精准编程的关键。
4 简化下游工艺:发展主动分泌与智能发酵策略
4.1 以主动分泌和智能发酵为核心,推动下游工艺简化与效率提升
当前微生物发酵主流的“胞内富集”范式,因下游提取纯化工艺极其复杂而成为产业化瓶颈。例如,从莱茵衣藻回收油脂与蛋白质需经多步酶解,最终仅释放73%的脂质[6],显著增加了成本并提高了操作复杂性。因此,构建能将产物主动分泌至发酵液的“胞外生产”体系,已成为解决该瓶颈的重要方向。此范式转变的核心在于重构生物制造流程,将产物积累位置从细胞内部转移至发酵液,从而规避繁复的细胞破碎与提取步骤。
构建产物胞外分泌体系的工程路径已从借鉴自然机制拓展至合成设计。自然界中的原型如微拟球藻的“红体”是一种具有自发荧光特性的膜结合细胞器,富含酮类胡萝卜素和长链脂肪族脂质,负责转运叶绿体合成的藻质素前体至质外体,为子代细胞细胞壁疏水层的组装提供关键原料[53]。这一结构证明了细胞器级主动分泌机制的存在。工程策略上,最直接的是利用特异性膜转运蛋白以“泵”出产物,但此法受限于已知转运蛋白的稀缺性。更精细的策略则聚焦于重构细胞内运输网络,通过工程化改造细胞器间的膜接触位点构建定向转运通道。解脂耶氏酵母中,过氧化物酶体几乎与所有其他细胞器形成膜接触位点并参与脂质运输[26],这为设计专用输出通道提供了极具潜力的生物学框架,但目前尚未见工程化脂滴与分泌途径间膜接触位点以实现脂质定向输出的相关报道。
4.2 智能发酵新方向:构建可响应工艺参数的动态脂滴系统
“智能发酵”旨在赋予细胞自主调控产物合成与释放的能力,其可行性根植于细胞天然的环境感知与信号转导系统。例如,产油细菌可通过“代谢-脂滴-DNA”交互网络调控脂滴周转[13]。然而,这些天然调控逻辑服务于细胞生存,如共生压力下形成脂滴增强存活[27],或营养充足时抑制脂质积累以保障生长[32]。因此,“智能发酵”的核心是通过合成生物学重编程感知框架,将细胞功能从服务生存转向高效生产。已有研究通过诱变筛选获得了在氮源充足时仍能积累脂质的微藻[32],证明天然代谢抑制可被重构。该策略的生物学基础在于,将细胞的天然感知能力与调控模块解耦并重构,以服务于可控的生物制造。
构建“智能发酵”体系的核心在于可编程的“自动储存”模块,即利用脂滴响应环境胁迫的天然机制,实现对工艺参数的自主响应与产物积累。这一过程需权衡产物积累与细胞适应性。在斜生栅藻中,过表达过氧化物酶体合成基因虽使中性脂含量提高2~3倍(盐胁迫下高出野生型约4倍),但脂滴过度积累却削弱了菌株的耐盐性[22]。然而,通过理性设计可实现双赢。工程化解脂耶氏酵母通过增强脂滴合成与脂肪酸代谢,其在无胁迫和高盐胁迫下的烷烃降解率分别为83.2%、77.2%,显著高于原始菌株的72.1%、65.2%[28]。这证实了精确调控脂滴储存不仅能提升产量,还能增强菌株稳健性。
“智能发酵”的更高目标是实现脂滴内产品化学组成的“精准调控”与“按需释放”,将脂滴从静态仓库重塑为动态调控枢纽。发酵工艺参数可定向调控产物组成,如在圆红冬孢酵母中,不同碳源可分别促进油酸、棕榈酸、硬脂酸的积累[47],其深层机制在于细胞感知代谢物变化并调整转录谱[13]。更重要的是控制释放时机。解脂耶氏酵母在胁迫下会主动水解脂滴,释放麦角甾醇以强化质膜[50]。该天然应激响应机制为设计响应外部信号并主动释放功能脂质的“智能释放阀”提供了原型。因此,整合代谢流的转录调控与脂滴周转的胁迫响应机制,有望构建出按需定制产品组分并精准释放的下一代细胞工厂。
5 改造食品级菌株的技术工具箱
为实现前述基于脂滴的储存、稳定与释放一体化工程策略,必须依托于高效、精准的菌株改造技术。本章将系统阐述多组学分析、合成生物学工具及定向进化等关键技术,这些工具共同构成了推动脂滴工程从理论体系走向实际生产的“技术引擎”。
5.1 多组学技术绘制食品功能因子合成的代谢地图
对食品级菌株进行脂滴工程改造,首要任务是利用基因组学与蛋白质组学绘制其功能元件图谱。基因组学可预测核心代谢途径及功能脂质合成的关键基因,如在粘红酵母中的成功应用[39]。蛋白质组学则进一步验证这些功能元件,例如在裂殖壶菌中鉴定出29种推定脂滴蛋白[49]。从基因到蛋白质的系统性盘点,是理解产油表型并奠定代谢工程基础的关键步骤[7]。因此,整合基因组预测与蛋白质组验证,可为菌株的理性设计建立完整的分子元件目录。
其次,利用脂质组学与代谢组学可对细胞内脂质谱和代谢状态进行精准解析。脂质组学能全面描绘功能性脂质图谱,如在粘红酵母中一次性鉴定出982种脂质分子[39],并在裂殖壶菌中精确定位富含二十二碳六烯酸的甘油三酯[49]。代谢组学则能实时监控发酵过程中的代谢物动态,例如在圆红冬孢酵母高密度发酵中,揭示了嘌呤与氨基酸代谢通路及ABC转运蛋白的显著变化[4]。重要的是,脂质组分和比例随发酵进程动态变化,反映了脂滴大小和周转能力的改变[54]。整合脂质组学与代谢组学,能构建动态的“代谢地图”,为优化功能配料的产量与组成提供关键数据支持。
为指导精准工程改造,比较与整合组学策略可用于揭示调控网络并锁定关键靶点。例如,对裂殖壶菌的时间分辨转录组分析揭示,高脂亚群上调脂肪酸合成通路,而低脂亚群则上调细胞周期及脂质降解基因[55]。比较蛋白质组学能更精确地识别关键蛋白,如在微拟球藻突变株中,发现脂滴表面蛋白表达量上调34.8倍,远高于野生型的8.5倍[56]。然而,揭示全局调控逻辑需整合多组学数据。对解脂耶氏酵母的整合组学分析表明,西罗莫司处理改变了2 224个基因的表达和176种代谢物,最终揭示了碳流从脂质合成转向脂肪酸降解和氨基酸合成的系统性重塑[52]。因此,通过比较与整合组学,可深入揭示驱动脂质高效合成的动态调控网络,为理性工程改造提供可靠的分子靶点。
5.2 用合成生物学和进化工程推动菌种升级
以成簇规则间隔短回文重复序列(clustered regularly interspaced short palindromic repeats,CRISPR)/CRISPR相关蛋白(CRISPR-associated,Cas)系统为核心的精准基因编辑技术是现代食品级菌株改造的关键工具,可实现对脂质代谢流的精确调控。其应用体现在:a)基因精准敲除与定量调控:在圆红冬孢酵母中,单敲除1个脂滴结构蛋白基因使脂质含量降低17%,同时敲除2个脂滴结构蛋白基因则进一步使脂质含量降低53%[51];b)关键酶的功能性修饰:在裂殖壶菌中,对DGAT2C进行N端截断可提升甾醇酯的生产力[43];c)底盘细胞定制化改造:通过在解脂耶氏酵母中敲除所有内源性DGAT活性,成功构建了用于筛选哺乳动物DGAT抑制剂的功能性平台[57]。因此,CRISPR技术为脂质代谢的定向重排与优化生产提供了强大的技术支撑。
单一基因编辑常不足以实现颠覆性突破,多基因协同的系统性重塑是构建高效“细胞工厂”的关键。该策略通过多基因突变的协同作用,能从根本上改变细胞代谢表型,例如通过6种遗传改造将非产油的酿酒酵母改造为甘油三酯含量高达65%的菌株[38]。系统性工程还体现在为特定应用构建底盘细胞,如通过敲除解脂耶氏酵母全部内源性DGAT基因,为异源表达和功能评估小鼠及人类DGAT2创造了“纯净”背景,从而建立了理想的酶抑制剂筛选平台[57]。因此,采用多基因协同的系统性代谢网络重塑,标志着微生物制造已从局部改良迈向全局设计的范式转变。
为应对工业环境胁迫或理性设计的局限,定向进化工程提供了一种无需预知靶点的菌株筛选策略。适应性实验室进化是增强菌株环境适应性的常用技术,例如经适应性实验室进化筛选的普通小球藻在高盐胁迫下总脂质积累量提升2.2倍[31]。更具创新性的策略是通过施加特定选择压力驱动进化,如通过酶解与离心筛选,获得了细胞体积增大2个数量级的角质皮孢酵母突变株YY52,其利用小麦和玉米秸秆的脂质产量分别高达55.4、58.4 g/L[37]。此外,传统诱变育种同样有效,如经等离子体诱变的长孢被孢霉突变株,其油脂质量分数和产量分别提高38.27%、41.76%[30]。因此,定向进化与理性设计互为补充,共同构成了驱动工业菌种性能突破的完整技术体系。
目前,通过在不同微生物中实施脂滴工程策略,已成功实现了多种高附加值功能性食品配料的高效合成,相关代表性研究见表1。
表1 通过脂滴工程策略增强功能性食品配料生产的代表性研究
Table 1 Representative studies on enhancing production of functional food ingredients via lipid droplet engineering strategies
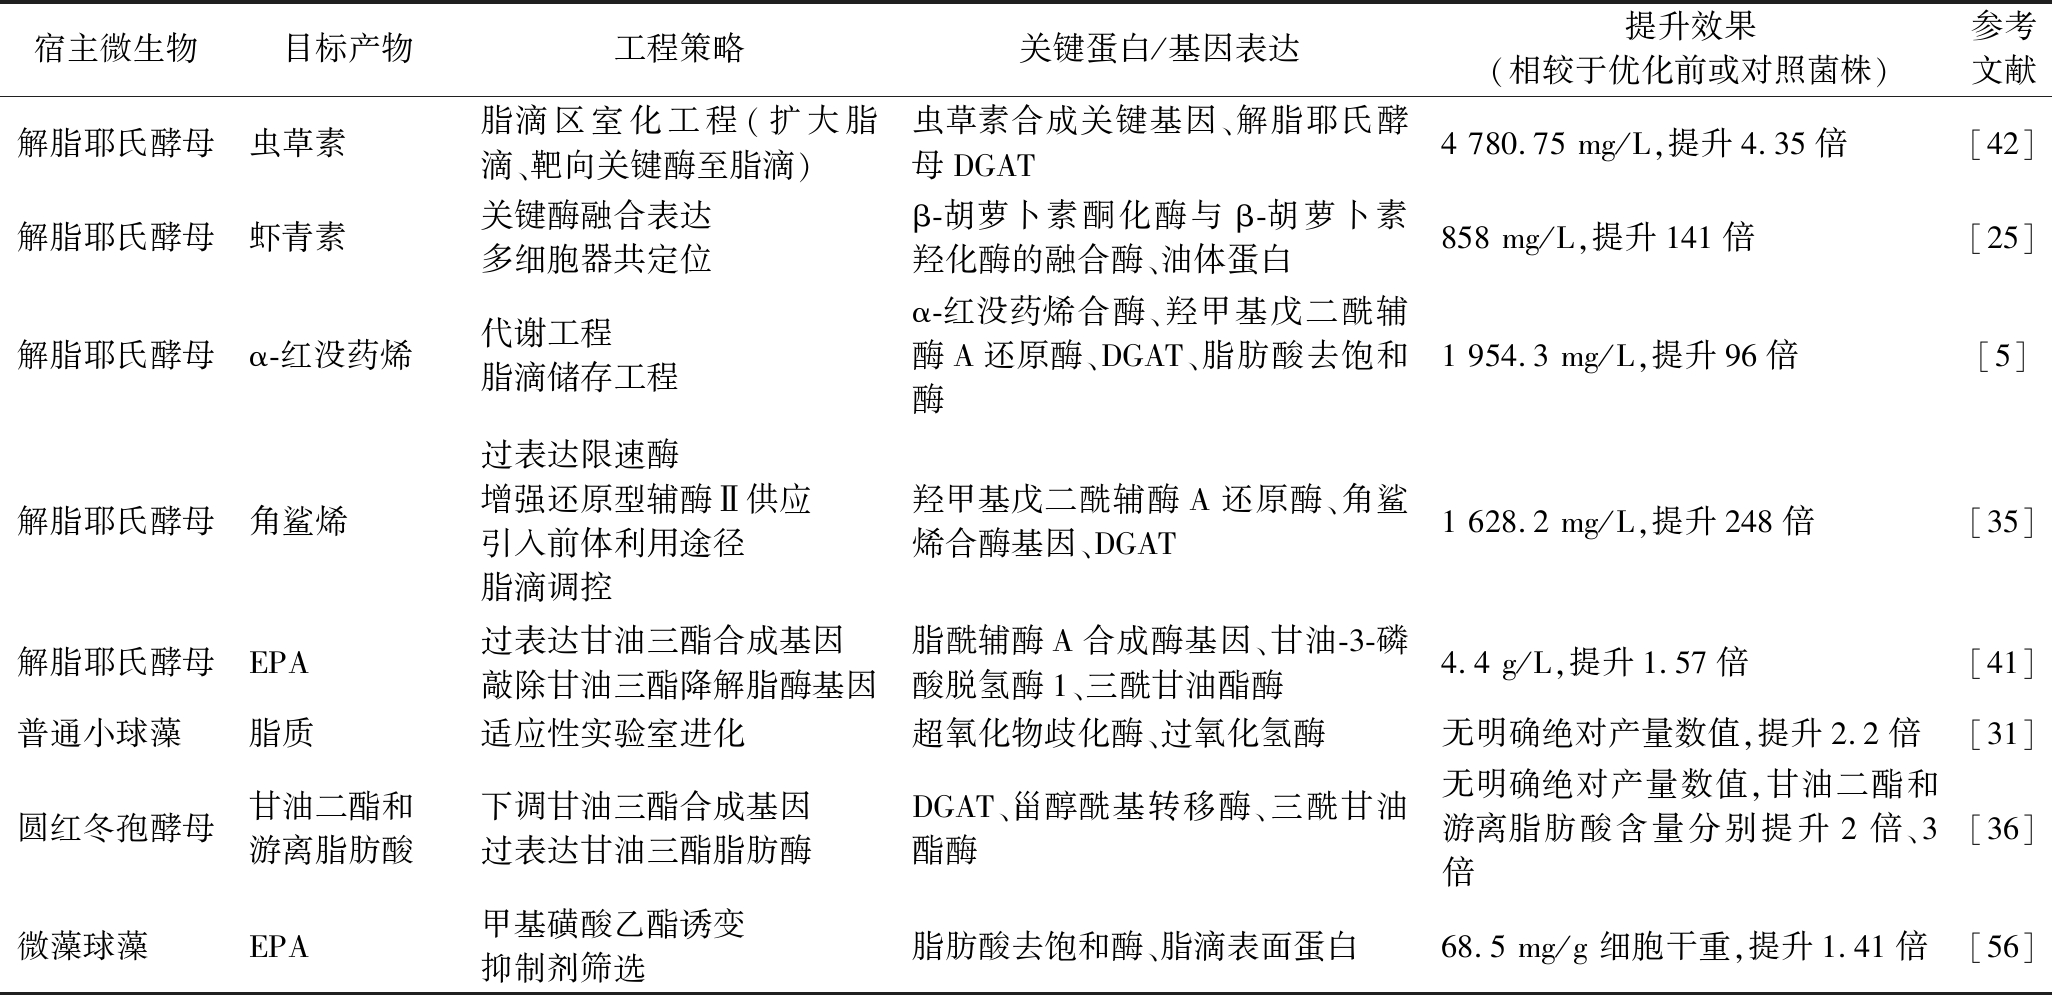
宿主微生物目标产物工程策略关键蛋白/基因表达提升效果(相较于优化前或对照菌株)参考文献解脂耶氏酵母虫草素脂滴区室化工程(扩大脂滴、靶向关键酶至脂滴)虫草素合成关键基因、解脂耶氏酵母DGAT4 780.75 mg/L,提升4.35倍[42]解脂耶氏酵母虾青素关键酶融合表达多细胞器共定位β-胡萝卜素酮化酶与β-胡萝卜素羟化酶的融合酶、油体蛋白858 mg/L,提升141倍[25]解脂耶氏酵母α-红没药烯代谢工程脂滴储存工程α-红没药烯合酶、羟甲基戊二酰辅酶A还原酶、DGAT、脂肪酸去饱和酶1 954.3 mg/L,提升96倍[5]解脂耶氏酵母角鲨烯过表达限速酶增强还原型辅酶Ⅱ供应引入前体利用途径脂滴调控羟甲基戊二酰辅酶A还原酶、角鲨烯合酶基因、DGAT1 628.2 mg/L,提升248倍[35]解脂耶氏酵母EPA过表达甘油三酯合成基因敲除甘油三酯降解脂酶基因脂酰辅酶A合成酶基因、甘油-3-磷酸脱氢酶1、三酰甘油酯酶4.4 g/L,提升1.57倍[41]普通小球藻脂质适应性实验室进化超氧化物歧化酶、过氧化氢酶无明确绝对产量数值,提升2.2倍[31]圆红冬孢酵母甘油二酯和游离脂肪酸下调甘油三酯合成基因过表达甘油三酯脂肪酶DGAT、甾醇酰基转移酶、三酰甘油酯酶无明确绝对产量数值,甘油二酯和游离脂肪酸含量分别提升2倍、3倍[36]微藻球藻EPA甲基磺酸乙酯诱变抑制剂筛选脂肪酸去饱和酶、脂滴表面蛋白68.5 mg/g 细胞干重,提升1.41倍[56]
6 结论与展望
本综述阐述了将脂滴从被动储存细胞器改造为多功能动态枢纽的前沿策略,推动了微生物制造功能性食品配料的范式从“合成与积累”转向“储存、稳定与释放”一体化调控。具体策略包括:通过区室化工程构建“营养微囊”以解决产量与毒性矛盾,利用结构蛋白工程构筑“抗氧化壁垒”提升产品稳定性,以及重编程降解途径安装“营养释放阀”实现按需释放。这标志着细胞工厂的设计理念正从生产最大化向产品性能最优化转变。
尽管潜力巨大,但实现“发酵智造”仍面临两大核心挑战。一是基础科学层面,对脂滴生命周期及其互作网络的动态调控机制缺乏深度定量认知,导致工程改造多依赖试错而非理性设计。二是应用技术层面,存在将实验室精巧设计转化为工业级应用的巨大技术鸿沟,尤其是在满足菌株稳健性、遗传稳定性及成本控制的严苛要求方面尚无成熟方案。因此,未来研究需从单元功能改造转向系统行为预测,并发展衔接细胞智能与宏观工艺的创新生物过程策略。
展望未来,为推动该领域实现跨越式发展,需重点突破三大前沿。在使能技术上,关键在于整合多组学与人工智能构建预测模型,并利用自动化平台加速“设计-构建-测试-学习”循环,实现从经验试错到理性设计的范式转变。在核心工具上,亟需开发新型动态生物传感器与正交调控遗传回路等合成生物学元件,为脂滴的智能响应提供分子硬件。最终,这些精密工程化的细胞工厂有望将应用从通用营养补充剂拓展至个性化精准营养、特殊医学用途配方食品及高端个人护理品等高附加值领域。
[1] Wang G L, Li M K, Ma M Y, et al.Increased accumulation of fatty acids in engineered Saccharomyces cerevisiae by co-overexpression of interorganelle tethering protein and lipases[J].New Biotechnology, 2025, 85:1-8.
[2] Zhu K, Li Y H, Cao C J, et al.High-yield production of novel C30 carotenoids with an artificial biosynthesis pathway in Yarrowia lipolytica[J].Journal of Agricultural and Food Chemistry, 2025, 73(41):26242-26255.
[3] Gu Y H, Jiao X, Ye L D, et al.Metabolic engineering strategies for de novo biosynthesis of sterols and steroids in yeast[J].Bioresources and Bioprocessing, 2021, 8(1):110.
[4] 方玉美, 赫玲玲, 程顺利, 等. 圆红冬孢酵母的高密度发酵产油过程研究[J]. 中国油脂, 2026, 51(1):97-102.Fang Y M, He L L, Cheng S L, et al. High density fermentation process for oil production of Rhodosporidium toruloides[J]. China Oils and Fats, 2026, 51(1):97-102.
[5] Lu Z H, Wang Y P, Li Z, et al.Combining metabolic engineering and lipid droplet storage engineering for improved α-bisabolene production in Yarrowia lipolytica[J].Journal of Agricultural and Food Chemistry, 2023, 71(30):11534-11543.
[6] Soto-Sierra L, Wilken L R, Dixon C K.Aqueous enzymatic protein and lipid release from the microalgae Chlamydomonas reinhardtii[J].Bioresources and Bioprocessing, 2020, 7(1):46.
[7] Gluth A, Trejo J B, Czaijka J J, et al.Proteomic insights into the physiology and metabolism of oleaginous yeasts and filamentous fungi[J].Frontiers in Microbiology, 2025, 16:1637123.
[8] Arhar S, Natter K.Common aspects in the engineering of yeasts for fatty acid- and isoprene-based products[J].Biochimica et Biophysica Acta(BBA)-Molecular and Cell Biology of Lipids, 2019, 1864(12):158513.
[9] Guéguen N, Le Moigne D, Amato A, et al.Lipid droplets in unicellular photosynthetic stramenopiles[J].Frontiers in Plant Science, 2021, 12:639276.
[10] Liu P Y, Wu J J, Li G, et al.The biosynthesis of astaxanthin esters in Schizochytrium sp.is mediated by a bifunctional diacylglycerol acyltransferase[J].Journal of Agricultural and Food Chemistry, 2024, 72(7):3584-3595.
[11] Roncaglia B, Papini A, Chini Zittelli G, et al.Cell wall and organelle modifications during nitrogen starvation in Nannochloropsis oceanica F&M-M24[J].Journal of Applied Phycology, 2021, 33(4):2069-2080.
[12] Morimoto Y, Saitoh S, Takayama Y.Growth conditions inducing G1 cell cycle arrest enhance lipid production in the oleaginous yeast Lipomyces starkeyi[J].Journal of Cell Science, 2022, 135(16):jcs259996.
[13] Alvarez H M, Lanfranconi M P, Hern ndez M A.Metabolism-lipid droplet-nucleic acid crosstalk to regulate lipid storage and other cellular processes in oleaginous Rhodococcus bacteria[J].Biology of the Cell, 2025, 117(1):e2400094.
[14] Chattopadhyay A, Singh R, Mitra M, et al.Identification and functional characterization of a lipid droplet protein CtLDP1 from an oleaginous yeast Candida tropicalis SY005[J].Biochimica et Biophysica Acta(BBA)-Molecular and Cell Biology of Lipids, 2020, 1865(8):158725.
[15] Jaussaud A, Lupette J, Salvaing J, et al.Stepwise biogenesis of subpopulations of lipid droplets in nitrogen starved Phaeodactylum tricornutum cells[J].Frontiers in Plant Science, 2020, 11:48.
[16] Zan X Y, Li A, Xu Y T, et al.Lipases from bacteria and fungi:Classification, subcellular localization, and regulation of activity[J].Journal of Agricultural and Food Chemistry, 2025, 73(27):16697-16714.
[17] Zienkiewicz A, Zienkiewicz K, Poliner E, et al.The microalga Nannochloropsis during transition from quiescence to autotrophy in response to nitrogen availability[J].Plant Physiology, 2020, 182(2):819-839.
[18] Tanaka T, Moriya S, Nonoyama T, et al.Lipid droplets-vacuoles interaction promotes lipophagy in the oleaginous diatom Fistulifera solaris[J].Algal Research, 2024, 79:103481.
[19] Nyunoya H, Ishibashi Y, Ito M, et al.Significance of mitochondrial fatty acid β-oxidation for the survivability of Aurantiochytrium limacinum ATCC MYA-1381 during sugar starvation[J].Bioscience, Biotechnology, and Biochemistry, 2022, 86(11):1524-1535.
[20] Okazaki K, Hori K, Iwai M, et al.Knockout of an SPX-related gene for polyphosphate synthetase accelerates phosphate starvation responses in the oleaginous microalga Nannochloropsis oceanica[J].Journal of Experimental Botany, 2025, 76(12):3593-3610.
[21] Duan L, Togou A, Ohta K, et al.Mitochondria-giant lipid droplet proximity and autophagy suppression in nitrogen-depleted oleaginous yeast Lipomyces starkeyi cells[J].The Journal of Biochemistry, 2025, 177(1):15-25.
[22] Wang W, Xue Y Z, Li B Z, et al.Effect of peroxisome proliferation and salt stress on enhancing the potential of microalgae as biodiesel feedstock[J].Renewable and Sustainable Energy Reviews, 2025, 212:115398.
[23] Abdelkarim O H, Verhagen R A, Wijffels R H, et al.Physiological, biochemical, and morphological responses to nitrogen starvation and biomass-specific photon supply rates of Nannochloropsis oceanica and Microchloropsis gaditana[J].Journal of Applied Phycology, 2025, 37(5):3539-3556.
[24] Kumar A, Baldia A, Rajput D, et al.Multiomics and optobiotechnological approaches for the development of microalgal strain for production of aviation biofuel and biorefinery[J].Bioresource Technology, 2023, 369:128457.
[25] Ma Y S, Li J B, Huang S W, et al.Targeting pathway expression to subcellular organelles improves astaxanthin synthesis in Yarrowia lipolytica[J].Metabolic Engineering, 2021, 68:152-161.
[26] Wu F, de Boer R, van der Klei I J.Gluing yeast peroxisomes-composition and function of membrane contact sites[J].Journal of Cell Science, 2023, 136(11):jcs259440.
[27] Dong P T, Tian J, Kobayashi-Kirschvink K J, et al.Episymbiotic Saccharibacteria induce intracellular lipid droplet production in their host bacteria[J].The ISME Journal, 2024, 18:wrad034.
[28] Zhu X Q, Wang S S, Cao Z B, et al.Construction of Yarrowia lipolytica capable of degrading alkanes and tolerating high-salt stress[J].ACS Sustainable Chemistry &Engineering, 2025, 13(30):11868-11883.
[29] Tang S Y, Gao W Z, Guo Q D, et al.Orchestrating multiple subcellular organelles of Saccharomyces cerevisiae for efficient production of squalene[J].Bioresource Technology, 2025, 424:132294.
[30] 程晗, 陈崇艺, 朱露露, 等.1株高产油脂长孢被孢霉MD-3菌株的诱变育种[J].食品科学, 2022, 43(10):180-188.Cheng H, Chen C Y, Zhu L L, et al.Obtainment and selection of a mutant strain of Mortierella elongata MD-3 showing improved oil production[J].Food Science, 2022, 43(10):180-188.
[31] Varunraj R, Priyadharshini U, Vijay K, et al.Adaptive laboratory evolution empowers lipids and biomass overproduction in Chlorella vulgaris for environmental applications[J].Environmental Research, 2023, 238:117125.
[32] Oyama T, Kato Y, Satoh K, et al.Development of mutant microalgae that accumulate lipids under nitrate-replete conditions[J].Algal Research, 2021, 60:102544.
[33] 范学宁, 成艳, 赵国服, 等.氮、磷源浓度对裂殖壶菌生长及油脂积累的影响[J].食品与发酵工业, 2022, 48(24):189-194.Fan X N, Cheng Y, Zhao G F, et al.Effects of nitrogen source and phosphorus source concentration on the growth and lipid accumulation of a strain of Schizochytrium sp[J].Food and Fermentation Industries, 2022, 48(24):189-194.
[34] Cui H L, Zhao C C, Xu W X, et al.Characterization of type-2 diacylglycerol acyltransferases in Haematococcus lacustris reveals their functions and engineering potential in triacylglycerol biosynthesis[J].BMC Plant Biology, 2021, 21(1):20.
[35] Liu Z Y, Huang M K, Chen H, et al.Metabolic engineering of Yarrowia lipolytica for high-level production of squalene[J].Bioresource Technology, 2024, 394:130233.
[36] Zhang Y, Zhang S F, Chu Y D, et al.Genetic manipulation of the interconversion between diacylglycerols and triacylglycerols in Rhodosporidium toruloides[J].Frontiers in Bioengineering and Biotechnology, 2022, 10:1034972.
[37] Liu Q, Li Y Y, Hou W L, et al.Cellulase mediated stress triggers the mutations of oleaginous yeast Trichosporon cutaneum with super-large spindle morphology and high lipid accumulation[J].Biotechnology Journal, 2023, 18(8):e2300091.
[38] Arhar S, Gogg-Fassolter G, Ogrizovi M, et al.Engineering of Saccharomyces cerevisiae for the accumulation of high amounts of triacylglycerol[J].Microbial Cell Factories, 2021, 20(1):147.
[39] Li C J, Zhao D, Cheng P, et al.Genomics and lipidomics analysis of the biotechnologically important oleaginous red yeast Rhodotorula glutinis ZHK provides new insights into its lipid and carotenoid metabolism[J].BMC Genomics, 2020, 21(1):834.
[40] Holert J, Brown K, Hashimi A, et al.Steryl ester formation and accumulation in steroid-degrading bacteria[J].Applied and Environmental Microbiology, 2020, 86(2):e02353-e02319.
[41] Qin J S, Liu N, Abid U, et al.Metabolic engineering of Yarrowia lipolytica for conversion of waste cooking oil into omega-3 eicosapentaenoic acid[J].ACS Engineering Au, 2025, 5(2):128-139.
[42] Duan X Y, Song L P, Jin Q, et al.Enhancing cordycepin biosynthesis in Yarrowia lipolytica via lipid droplets compartmentalization engineering and optimized fermentation strategies[J].Journal of Agricultural and Food Chemistry, 2025, 73(21):12908-12916.
[43] Ishibashi Y, Sadamitsu S, Fukahori Y, et al.Characterization of thraustochytrid-specific sterol O-acyltransferase:modification of DGAT2-like enzyme to increase the sterol production in Aurantiochytrium limacinum mh0186[J].Applied and Environmental Microbiology, 2023, 89(11):e0100123.
[44] Guo Q, Yang Y X, Li D X, et al.Advances in multi-enzyme co-localization strategies for the construction of microbial cell factory[J].Biotechnology Advances, 2024, 77:108453.
[45] De Novaes M I C, Robertson C, Doyle V P, et al.Distribution and sequestration of cercosporin by Cercospora cf.flagellaris[J].Phytopathology, 2024, 114(8):1822-1831.
[46] Yan Q, Jacobson T B, Ye Z, et al.Evaluation of 1,2-diacyl-3-acetyl triacylglycerol production in Yarrowia lipolytica[J].Metabolic Engineering, 2023, 76:18-28.
[47] 龚佳, 黄其田, 史荣超, 等.碳源、温度和pH对产油酵母脂肪酸组成的影响[J].食品与发酵工业, 2022, 48(7):29-35.Gong J, Huang Q T, Shi R C, et al.Effects of carbon source, culture temperature, and pH on composition of fatty acids produced by oleaginous yeast[J].Food and Fermentation Industries, 2022, 48(7):29-35.
[48] Hulatt C J, Smolina I, Dowle A, et al.Proteomic and transcriptomic patterns during lipid remodeling in Nannochloropsis gaditana[J].International Journal of Molecular Sciences, 2020, 21(18):6946.
[49] Yoneda K, Ishibashi Y, Yoshida M, et al.Proteomic and lipidomic analyses of lipid droplets in Aurantiochytrium limacinum ATCC MYA-1381[J].Algal Research, 2022, 67:102844.
[50] Ta T M N, Romero-Guido C, Phan T H, et al.Encapsulation of flavours into Yarrowia lipolytica active yeast cells.Fluorescence study of the lipid droplets morphology and steryl/sterol balance during the shock[J].AIMS Biophysics, 2022, 9(3):257-270.
[51] Jiao X, Lyu L T, Zhang Y, et al.Reduction of lipid-accumulation of oleaginous yeast Rhodosporidium toruloides through CRISPR/Cas9-mediated inactivation of lipid droplet structural proteins[J].FEMS Microbiology Letters, 2021, 368(16):fnab111.
[52] Liu Z Y, Tian J J, Miao Z G, et al.Metabolome and transcriptome profiling reveal carbon metabolic flux changes in Yarrowia lipolytica cells to rapamycin[J].Journal of Fungi, 2022, 8(9):939.
[53] Gee C W, Andersen-Ranberg J, Boynton E, et al.Implicating the red body of Nannochloropsis in forming the recalcitrant cell wall polymer algaenan[J].Nature Communications, 2024, 15:5456.
[54] Joshi A R, Barvkar V T, Kashikar A, et al.Dynamics of the lipid body lipidome in the oleaginous yeast Yarrowia sp[J].FEMS Yeast Research, 2024, 24:foae021.
[55] Bao Z D, Zhu Y M, Zhang K, et al.New insights into phenotypic heterogeneity for the distinct lipid accumulation of Schizochytrium sp.H016[J].Biotechnology for Biofuels and Bioproducts, 2022, 15(1):33.
[56] Wan Razali W A, Evans C A, Pandhal J.Comparative proteomics reveals evidence of enhanced EPA trafficking in a mutant strain of Nannochloropsis oculata[J].Frontiers in Bioengineering and Biotechnology, 2022, 10:838445.
[57] Gajdoš P, Ledesma-Amaro R, Nicaud J-M, et al.A yeast-based tool for screening mammalian diacylglycerol acyltransferase inhibitors[J].Microbiologyopen, 2022, 11(6):e1334.