蛋白酶作为一类催化蛋白质水解的关键酶类,在日化、食品加工、饲料工业及生物修复等领域具有广泛应用[1-3]。例如,碱性蛋白酶能高效降解蛋白类污渍,提升洗涤剂效能[4-6];在食品工业中用于肉类嫩化、活性肽制备[7-9];在环保领域可降解蛋白质污染物,推动绿色技术发展[10-12]。然而,当前商业化蛋白酶制剂,仍普遍存在酶活力偏低、热稳定性不足、在极端pH条件下易失活以及催化特性同质化等问题,难以满足日益增长的工业应用需求[13-15]。因此,发掘具有新颖催化特性的蛋白酶资源成为该领域的研究热点之一。
特殊生物环境微生物因其独特的代谢途径和适应机制,是发现新型酶分子的重要宝库[16-18]。海洋环境具有高盐、高压、低温及营养稀缺等特点,其微生物常进化出特殊的酶系统以适应环境[19-20]。相较于传统陆生菌株,源自海洋环境的蛋白酶往往具备诸如低温高活性、耐盐碱等独特性质,具有巨大的开发潜力[21]。近年来,鱼类肠道微生物因其与宿主的共生关系及对高蛋白食物的适应性,是产蛋白酶微生物的优良来源[22-24]。罗非鱼(Oreochromis mossambicus)作为典型的杂食性鱼类,其肠道内蕴藏着丰富且多样的微生物群落,这些微生物参与了宿主的蛋白质消化过程,存在大量未被开发利用的产蛋白酶菌株[25-26]。
基于此,本研究拟以海产罗非鱼肠道共生微生物菌群为对象,从中分离具有产蛋白酶能力的微生物菌株,其研究结果可进一步丰富产蛋白酶微生物资源库,为寻求新型蛋白酶制剂奠定基础。
1 材料与方法
1.1 实验材料
海产罗非鱼,湛江硇洲岛码头。
苯甲基磺酰氟(phenylmethylsulfonyl fluoride,PMSF)、亮抑酶肽(leupeptin)、 抑肽素A(pepstatin A),sigma公司;酵母粉、蛋白胨、牛肉膏、琼脂粉及其它化学试剂,国药集团。
1.2 仪器与设备
HYQ-60全恒温摇床,武汉汇诚生物科技有限公司;T6新世纪紫外可见分光光度计,北京普析通用仪器有限责任公司;FE28台式pH计,梅特勒-托利多仪器(上海)有限公司;SH-CJ-2ED垂直洁净工作台,上海博讯实业有限公司医疗设备厂;PSH-200生化培养箱,中科生命科技股份有限公司;CX21型生物显微镜,台湾奥林巴斯股份有限公司。BLBIO-5GJ发酵罐,上海百仑生物科技有限公司;3~18K高速冷冻离心机,Sigma-Aldrich公司。
1.3 培养基
富集培养基(g/L):酵母粉5,蛋白胨10,NaCl 5,pH 7.0~7.2。
平板分离培养基(g/L):脱脂奶粉20、蔗糖10、琼脂粉15,pH 7.0~7.2。
试管斜面培养基(g/L):牛肉膏5,蛋白胨10,NaCl 5,琼脂粉12,pH 7.0~7.2。
液体种子培养基(g/L):酵母浸粉5、蛋白胨10、NaCl 5、pH 7.0~7.2。
复筛(发酵)培养基(g/L):蔗糖40、蛋白胨20、K2HPO4 3、CaCO3 3,pH 7.5。
1.4 实验方法
1.4.1 微生物菌株的富集培养
取罗非鱼鱼肠约1 g,剪碎后加入到含有50 mL富集培养基的三角瓶中,置于180 r/min、35 ℃条件下振荡培养24 h。
1.4.2 产蛋白酶菌株的初筛
取富集培养液1 mL,梯度稀释;用移液枪吸取0.2 mL稀释液涂布到分离平板培养基上,每个稀释梯度的菌悬液涂布3个平板,于生化培养箱中35 ℃倒置培养14~18 h,观察平板上菌落生长及透明水解圈的形成情况,测量透明圈直径(Dp)与菌落直径(Dc)比值(Dp/Dc)作为评价依据,结合菌落形态差异挑选出目标菌株并转接到试管斜面保藏。
1.4.3 产蛋白酶菌株的复筛(发酵)
1.4.3.1 种子培养
从初筛获得的试管斜面菌种取1环接种到50 mL液体种子培养基中,将三角瓶置于35 ℃、200 r/min的摇床上振荡培养20~24 h。
1.4.3.2 液体发酵
取2 mL种子液接种到50 mL发酵培养基中,将三角瓶置于35 ℃、200 r/min的摇床上振荡培养48 h。取发酵液测定其蛋白酶活力,根据酶活力确定产酶菌株。
1.4.4 蛋白酶性质的分析
1.4.4.1 LfF-1蛋白酶的制备
收集LfF-1菌株的发酵液,在4 ℃、8 000 r/min离心10 min,收集上清液,即为LfF-1蛋白酶。
1.4.4.2 pH对LfF-1蛋白酶活性及稳定性的影响
分别在pH值为4、5、6、7、8、9、10、11、12的条件下测定蛋白酶活力,比较不同pH下酶活力高低,以此确定LfF-1蛋白酶的最适pH。
用缓冲液调节酶液的pH值为4、5、6、7、8、9、10、11、12,将酶液置于35 ℃水浴中保温60 min。测定保温前后蛋白酶的活力,计算不同pH下酶液的相对酶活力,以此考察LfF-1蛋白酶的pH稳定性。
1.4.4.3 温度对LfF-1蛋白酶活性及稳定性的影响
分别在不同温度(20~60 ℃,每隔5 ℃为一组)测定蛋白酶的活力,比较不同温度下酶活力,考察温度对LfF-1蛋白酶活性的影响,确定该蛋白酶的最适温度。
用pH 11.0、浓度0.05 mol/L NaHCO3-NaOH缓冲液稀释酶液,将稀释酶液分别置于不同温度(20~60 ℃)下保温60 min,测定保温前后蛋白酶的活力,比较不同温度下的相对酶活力,由此考察不同温度下蛋白酶的稳定性。
1.4.4.4 抑制剂、金属离子及NaCl对LfF-1蛋白酶催化活性的影响
用pH 11.0、浓度0.05 mol/L NaHCO3-NaOH缓冲液稀释酶液,在其中分别添加Ca2+、Mg2+、Zn2+、Cu2+、Mn2+、Fe2+、Co2+、Fe3+金属离子溶液,蛋白酶抑制剂EDTA、PMSF、亮抑酶肽(leupeptin)、抑肽素A(pepstatin A)或NaCl,混匀后于室温静置60 min,测定处理前后蛋白酶的活力,计算相对酶活力。
1.4.5 菌株鉴定
1.4.5.1 形态学鉴定
采用划线法将目的菌株接种到固体培养基表面,在35 ℃恒温培养18 h后,观察目的菌株的菌落形态特征,包括菌落的大小、颜色、质地、透明度、隆起形态、边缘特征等。挑取单菌落进行革兰氏染色和芽孢染色,在显微镜下观察细胞形态特征。
1.4.5.2 生理生化鉴定
将纯化后的LfF-1菌株保存于试管斜面培养基上,送中国科学院微生物研究所进行菌种鉴定。依据《常见细菌系统鉴定手册》中所述方法及项目,分析菌株的生理生化特征。
1.4.5.3 分子生物学鉴定
参考文献[27]方法,采用16S rRNA与gyrB基因联合构建系统发育树,以此确定菌株的分类地位。用细菌基因组DNA抽提试剂盒提取LfF-1菌株的总DNA,分别用16S rRNA与gyrB的通用引物(27F/1492R,UP-1/UP-2r)扩增,所得PCR产物电泳纯化后,送上海生工生物工程股份有限公司测序;将测序结果在GenBank进行比对,下载相似菌株的16S rRNA与gyrB序列,分别用BioEdit和Clustal X工具进行比对和编辑,取有效区段;将菌株16S rRNA与gyrB的有效序列进行线形拼接,使用MEGA 11 软件的Maximum Likelihood方法构建系统发育树。
1.4.6 菌株发酵产酶培养基的优化
1.4.6.1 碳源对LfF-1菌株发酵产酶的影响
在原发酵培养基中,分别以葡萄糖、乳糖、麦芽糖、蔗糖、可溶性淀粉为碳源,保持培养基其他成分不变,接种LfF-1液体种子进行发酵实验,测定发酵液的蛋白酶活力,根据酶活力比较不同碳源的发酵效果。
在原发酵培养基中,分别以不同质量浓度(10~70 g/L)的乳糖作为碳源,接种LfF-1液体种子进行发酵实验,测定发酵液的蛋白酶活力,根据酶活力确定碳源的适宜浓度。
1.4.6.2 氮源对贝莱斯芽孢杆菌LfF-1菌株发酵的影响
在原发酵培养基中,分别以牛肉膏、蛋白胨、酵母膏、大豆粉、NH4Cl为氮源,保持培养基其他成分不变,接种LfF-1液体种子进行发酵实验,测定发酵液的蛋白酶活力,根据酶活力比较不同氮源的发酵效果。
在原发酵培养基中,分别以不同质量浓度(5~60 g/L)的牛肉膏作为氮源进行发酵实验,测定发酵液的蛋白酶活力,根据酶活力确定氮源的适宜浓度。
1.4.6.3 无机盐对菌株发酵的影响
以30 g/L乳糖为碳源,20 g/L牛肉膏为氮源,分别添加3 g/L KH2PO4、K2HPO4、KH2PO4+K2HPO4(1∶1混合),CaCO3、CaCl2、MgSO4、ZnSO4、Fe2(SO4)3、MnSO4溶液,进行发酵实验,测定发酵液的蛋白酶活力,根据酶活力评价不同无机盐对发酵产酶的影响。
以30 g/L乳糖为碳源,20 g/L的牛肉膏为氮源,分别添加不同质量浓度(1~11 g/L)KH2PO4溶液,进行发酵实验,测定发酵液的蛋白酶活力,根据酶活力确定KH2PO4的适宜浓度。
1.4.6.4 麸皮添加量对菌株发酵产酶的影响
在发酵培养基中分别添加不同质量浓度(0~70 g/L)麸皮,进行发酵实验,测定发酵液的蛋白酶活力,根据酶活力评价麸皮添加对菌株发酵产酶的影响。
1.4.6.5 培养基pH对菌株发酵的影响
调节发酵培养基的pH值在5.0~10.0,每间隔0.5为一组,接种LfF-1菌种进行发酵实验,测定发酵液的蛋白酶活力,根据酶活力确定培养基的适宜pH。
1.4.6.6 发酵培养基的响应面优化
在单因素试验的基础上,采用Design-Expert软件的中心组合实验设计综合考察乳糖、酵母膏、KH2PO4及麸皮4个因素对LfF-1菌株发酵产酶的影响,因素水平设计如表1所示。
表1 中心组合设计因素水平表
Table 1 Factors and levels of central composite design
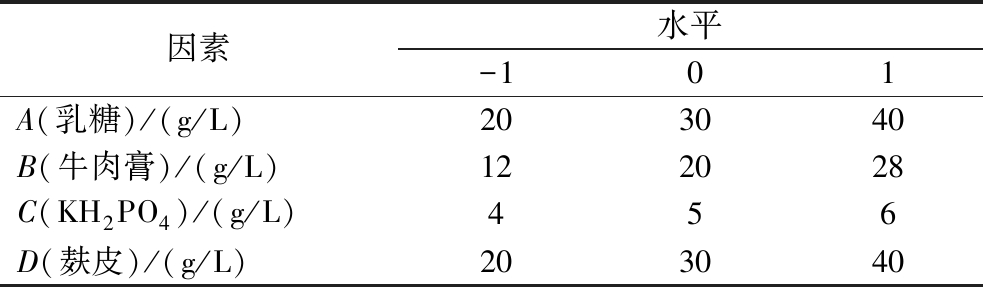
因素水平-101A(乳糖)/(g/L)203040B(牛肉膏)/(g/L)122028C(KH2PO4)/(g/L)456D(麸皮)/(g/L)203040
1.4.7 温度及时间对菌株发酵的影响
采用优化后的发酵培养基,设定发酵温度在24~42 ℃,每间隔3 ℃为一组,接种LfF-1菌种进行发酵实验,测定发酵液的蛋白酶活力,根据酶活力确定适宜的发酵温度。
采用优化后的发酵培养基,分别在恒温(固定温度33 ℃)及变温(发酵前30 h固定温度为33 ℃,后期温度稳定在27 ℃)条件下进行发酵实验,测定发酵液蛋白酶活力随发酵时间的变化曲线。
1.4.8 发酵工艺的小试
5 L发酵罐中装2.8 L发酵培养基,4%接种量;发酵初期(0~24 h),温度设定为33 ℃,无菌空气流量125 L/h,搅拌转速180 r/min,自动滴加消泡剂控制发酵罐中泡沫水平;发酵中后期(24 h至结束),温度27 ℃,无菌空气流量175 L/h,搅拌转速300 r/min。
1.4.9 分批补料发酵工艺的小试
5 L发酵罐中装2.5 L发酵培养基,4%接种量;发酵初期(0~24 h),温度为33 ℃,无菌空气流量125 L/h,搅拌转速180 r/min,自动滴加消泡剂控制发酵罐中泡沫水平;发酵中后期(24 h至结束),温度27 ℃,无菌空气流量210 L/h,搅拌转速300 r/min,以10 mL/min的流速向发酵罐中流加已灭菌的发酵培养基2 L。
1.4.10 发酵液酶活力测定
发酵液蛋白酶活力采用Folin试剂显色法测定[28],以酪蛋白为底物,在pH 9.0、40 ℃的条件下测定。
1.5 数据处理
实验均独立重复3次,结果以“平均值±标准差”呈现。采用GraphPad Prism 10软件进行数据处理以及统计数据的可视化。
2 结果与分析
2.1 产蛋白酶菌株的筛选
采用平板分离法从罗非鱼肠道中分离出10个菌株(表2),经复筛确认分离得到的菌株都有一定的产蛋白酶能力,显示透明圈平板分离产蛋白酶菌株具有可行性。实验结果发现,复筛阶段测定的发酵液酶活力高低与菌株在初筛平板上透明圈大小有一定的对应关系,但也存在偏差。如LfC-2菌株在平板上的水解圈很显著,但是其发酵液酶活力却很低;LfF-3的水解圈不显著,但是其发酵液的酶活力却显著高于同一水平的菌株。因此,平板上蛋白水解圈仅适用于判定菌株是否产蛋白酶,不能作为菌株产酶能力的评价标准。实验结果可以看出,罗非鱼肠道菌群中有大量的产蛋白酶微生物,是获取此类菌株的重要资源。通过复筛确定LfF-1菌株具有相对较高的产蛋白酶能力。
表2 产蛋白酶菌株筛选结果
Table 2 Screening results of protease-producing strains
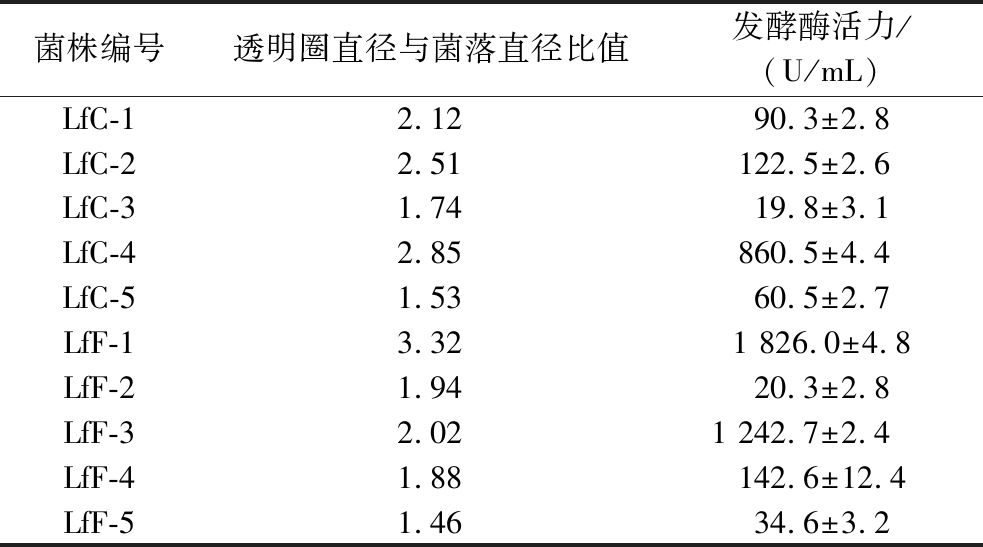
菌株编号透明圈直径与菌落直径比值发酵酶活力/(U/mL)LfC-12.1290.3±2.8LfC-22.51122.5±2.6LfC-31.7419.8±3.1LfC-42.85860.5±4.4LfC-51.5360.5±2.7LfF-13.321 826.0±4.8LfF-21.9420.3±2.8LfF-32.021 242.7±2.4LfF-41.88142.6±12.4LfF-51.4634.6±3.2
2.2 LfF-1蛋白酶催化性质分析
2.2.1 温度对LfF-1蛋白酶活性及稳定性的影响
由图1可知,LfF-1蛋白酶的最适作用温度约为35 ℃,在25 ℃时仍保留有82.12%的最大催化活性,具有较好的低温催化性能;热稳定性方面,该酶在40 ℃以下稳定性良好,温度高于45 ℃时,酶活力快速下降,热稳定性急剧降低。
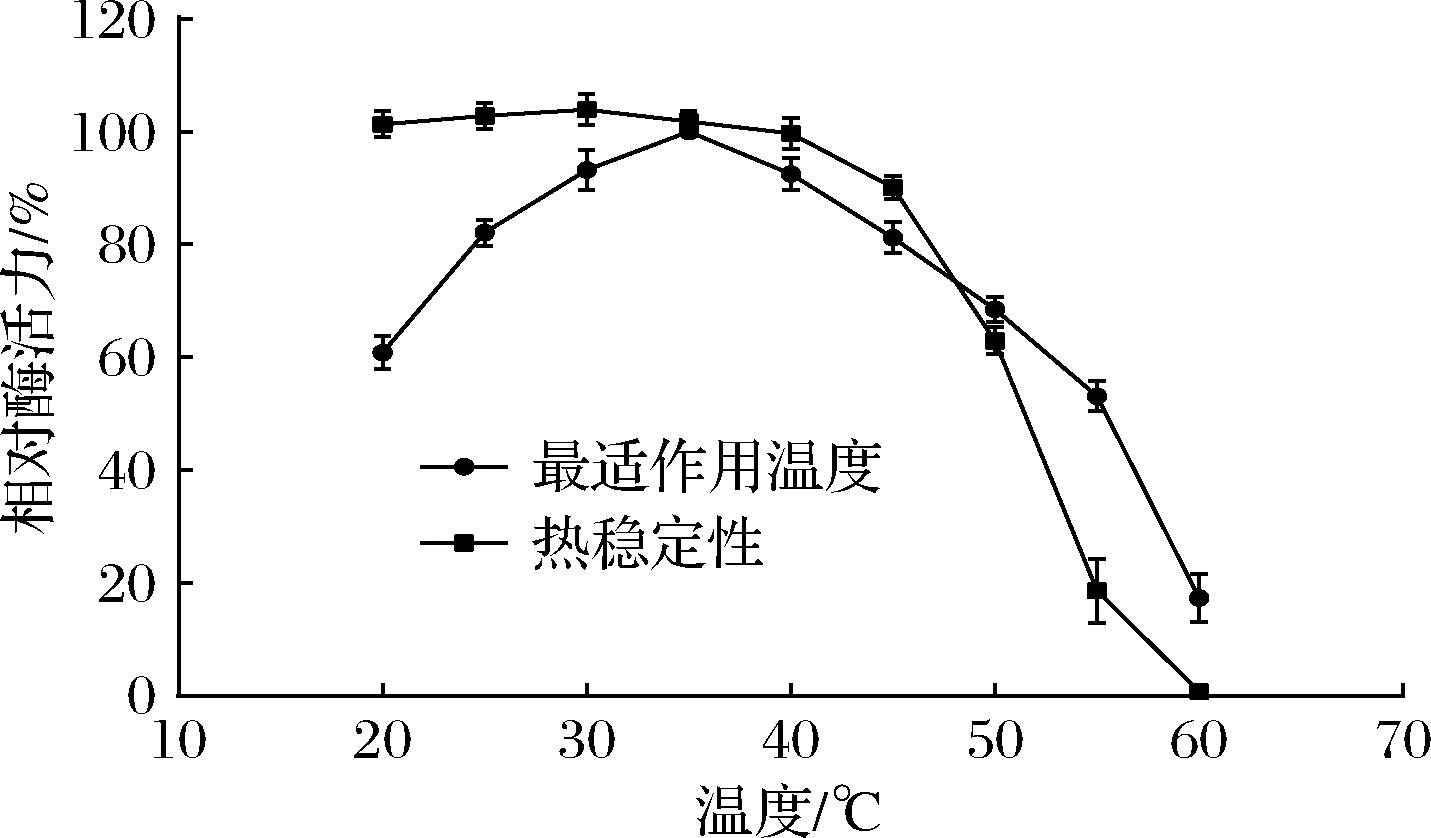
图1 温度对LfF-1蛋白酶活性及稳定性的影响
Fig.1 Effect of temperature on activity and stability of LfF-1 protease
2.2.2 pH对LfF-1蛋白酶活性及稳定性的影响
如图2所示,LfF-1蛋白酶是一种嗜碱性蛋白酶,其最适作用pH值在11附近;该酶在中性至弱碱性条件下也表现出较强的催化活性,显示出较宽泛的pH适应性。稳定性实验结果表明,该蛋白酶在pH 8~12范围内结构稳定性较好,当pH值<6时会迅速变性失活。
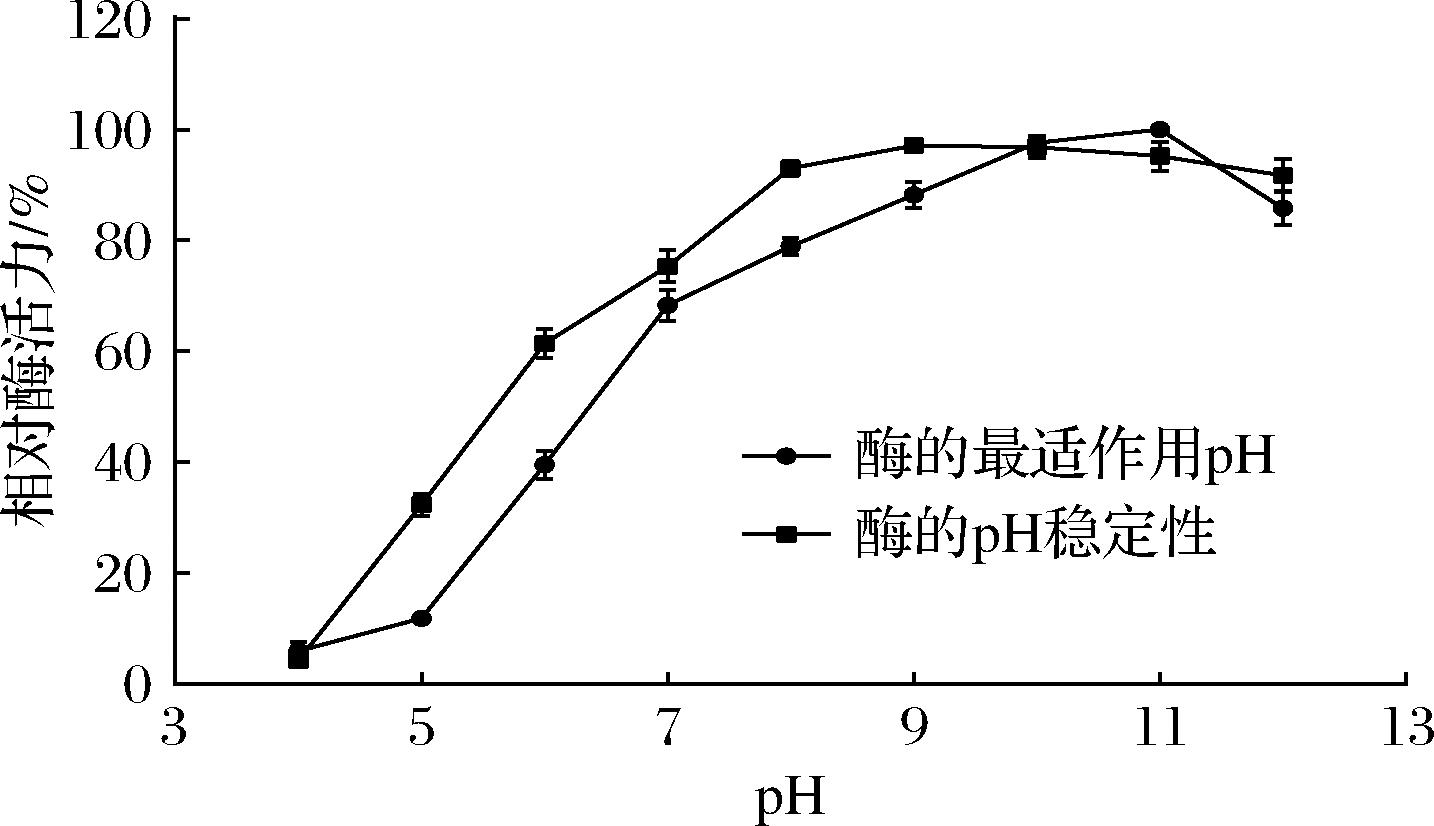
图2 pH对LfF-1蛋白酶活性及稳定性的影响
Fig.2 Effect of pH on activity and stability of LfF-1 protease
2.2.3 抑制剂、金属离子及NaCl对蛋白酶活性的影响
如表3所示,酶液中添加10 mmol/L EDTA可显著抑制该蛋白酶的催化活性[相对酶活力仅(2.35±1.32)%],Mn2+、Zn2+、Fe3+等可以显著抑制其活性;抑制剂PMSF、leupeptin及pepstatin A对该酶活性无显著影响,结果表明该酶为金属蛋白酶。此外,该酶表现出良好的耐盐性,50 g/L NaCl溶液对其催化活性无显著影响[相对酶活力(96.68±1.34)%],在100 g/L NaCl溶液中仍保留有(81.46±2.21)%的酶活力。
表3 抑制剂、金属离子及NaCl对LfF-1菌株蛋白酶活性的影响
Table 3 Effects of inhibitors and metal ions on protease activity of LfF-1 strain
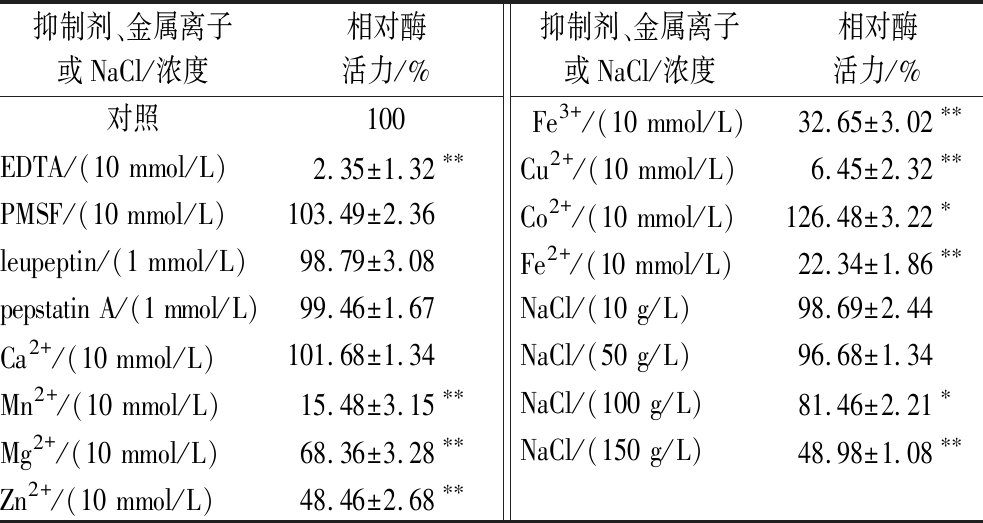
注:*表示与对照组相比差异显著(P<0.05),**表示与对照组相比差异极显著(P<0.01)。
抑制剂、金属离子或NaCl/浓度相对酶活力/%抑制剂、金属离子或NaCl/浓度相对酶活力/%对照100Fe3+/(10 mmol/L)32.65±3.02∗∗EDTA/(10 mmol/L)2.35±1.32∗∗Cu2+/(10 mmol/L)6.45±2.32∗∗PMSF/(10 mmol/L)103.49±2.36Co2+/(10 mmol/L)126.48±3.22∗leupeptin/(1 mmol/L)98.79±3.08Fe2+/(10 mmol/L)22.34±1.86∗∗pepstatin A/(1 mmol/L)99.46±1.67NaCl/(10 g/L)98.69±2.44Ca2+/(10 mmol/L)101.68±1.34NaCl/(50 g/L)96.68±1.34Mn2+/(10 mmol/L)15.48±3.15∗∗NaCl/(100 g/L)81.46±2.21∗Mg2+/(10 mmol/L)68.36±3.28∗∗NaCl/(150 g/L)48.98±1.08∗∗Zn2+/(10 mmol/L)48.46±2.68∗∗
2.3 LfF-1菌株的鉴定
2.3.1 生理生化鉴定结果
如图3所示,LfF-1菌株在牛奶平板上形成米黄色不透明菌落,且菌落表面粗糙、隆起、边缘不规则。通过革兰氏染色、芽孢染色及显微镜观察可知,该菌株细胞形态呈短杆状、革兰氏阳性、可形成芽孢。根据其生理生化特征(表4),菌株接触酶、氧化酶阳性、淀粉水解阳性、有较强的耐盐性 (8% NaCl条件下可生长)和一定的耐酸性,结合碳源利用能力和化学敏感性图谱所形成的“代谢指纹”,对比BIOLOG 数据库,可初步确定该菌株属于解淀粉芽孢杆菌种。
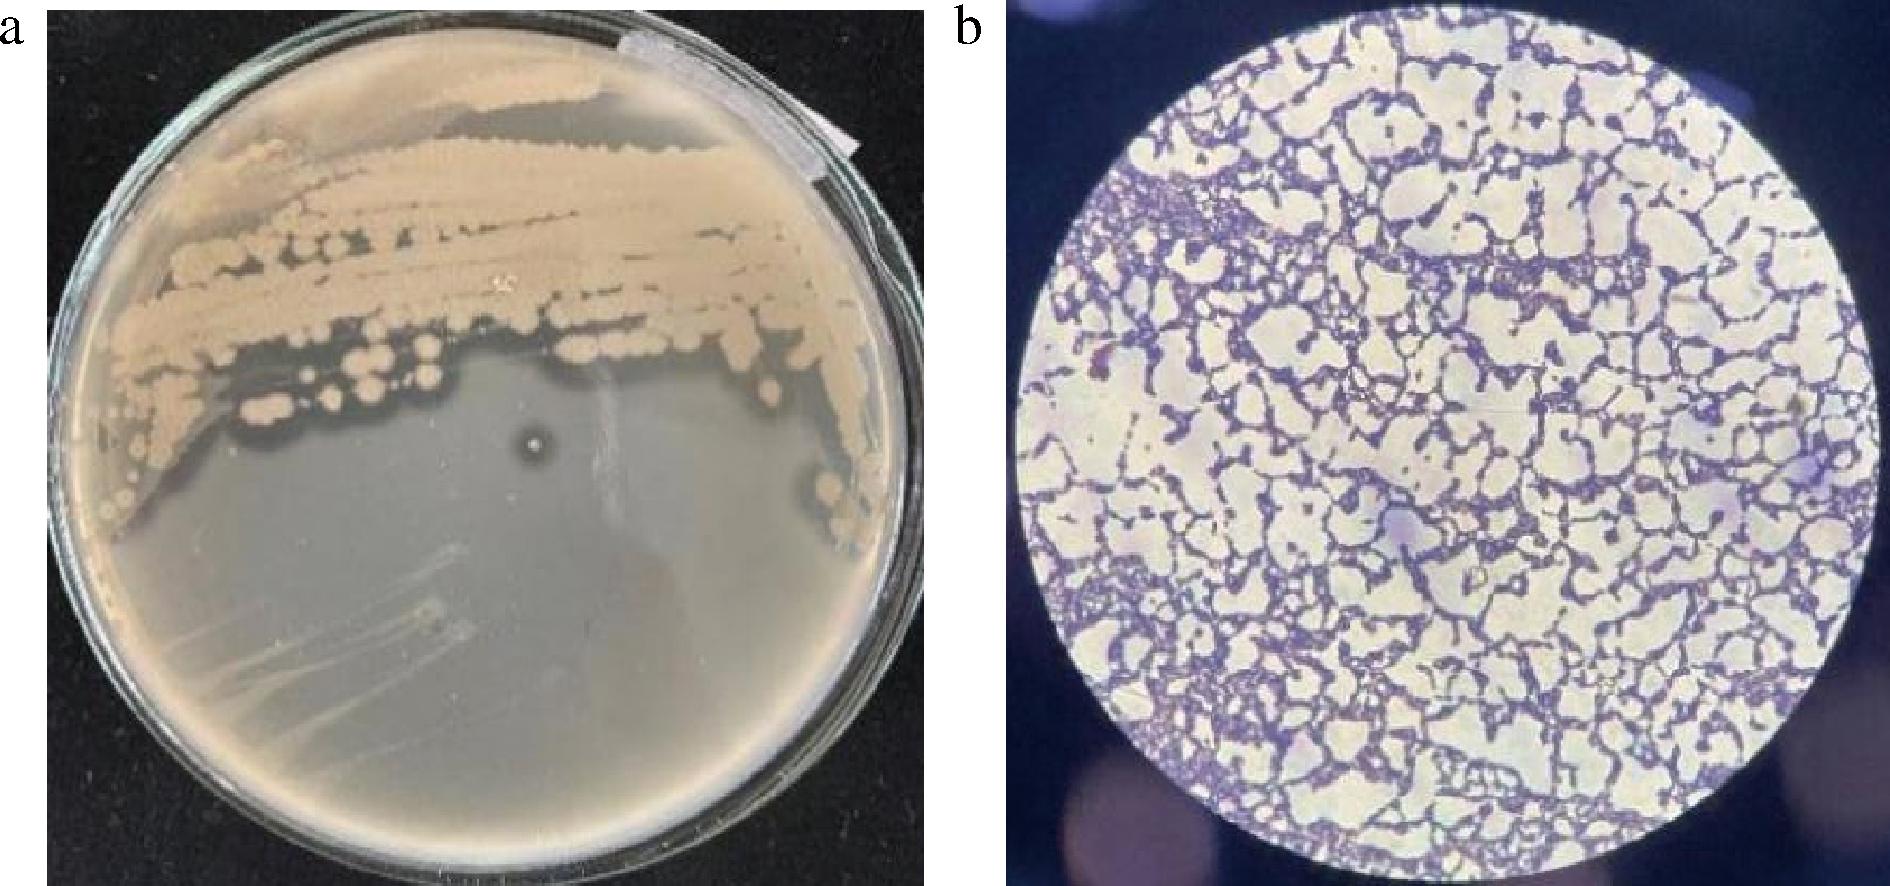
a-菌落形态;b-革兰氏染色
图3 LfF-1的菌落形态和革兰氏染色
Fig.3 Colony morphology and gram staining of LfF-1
表4 LfF-1菌株的生理生化特征
Table 4 Physiobiochemical characteristics of strain LfF-1
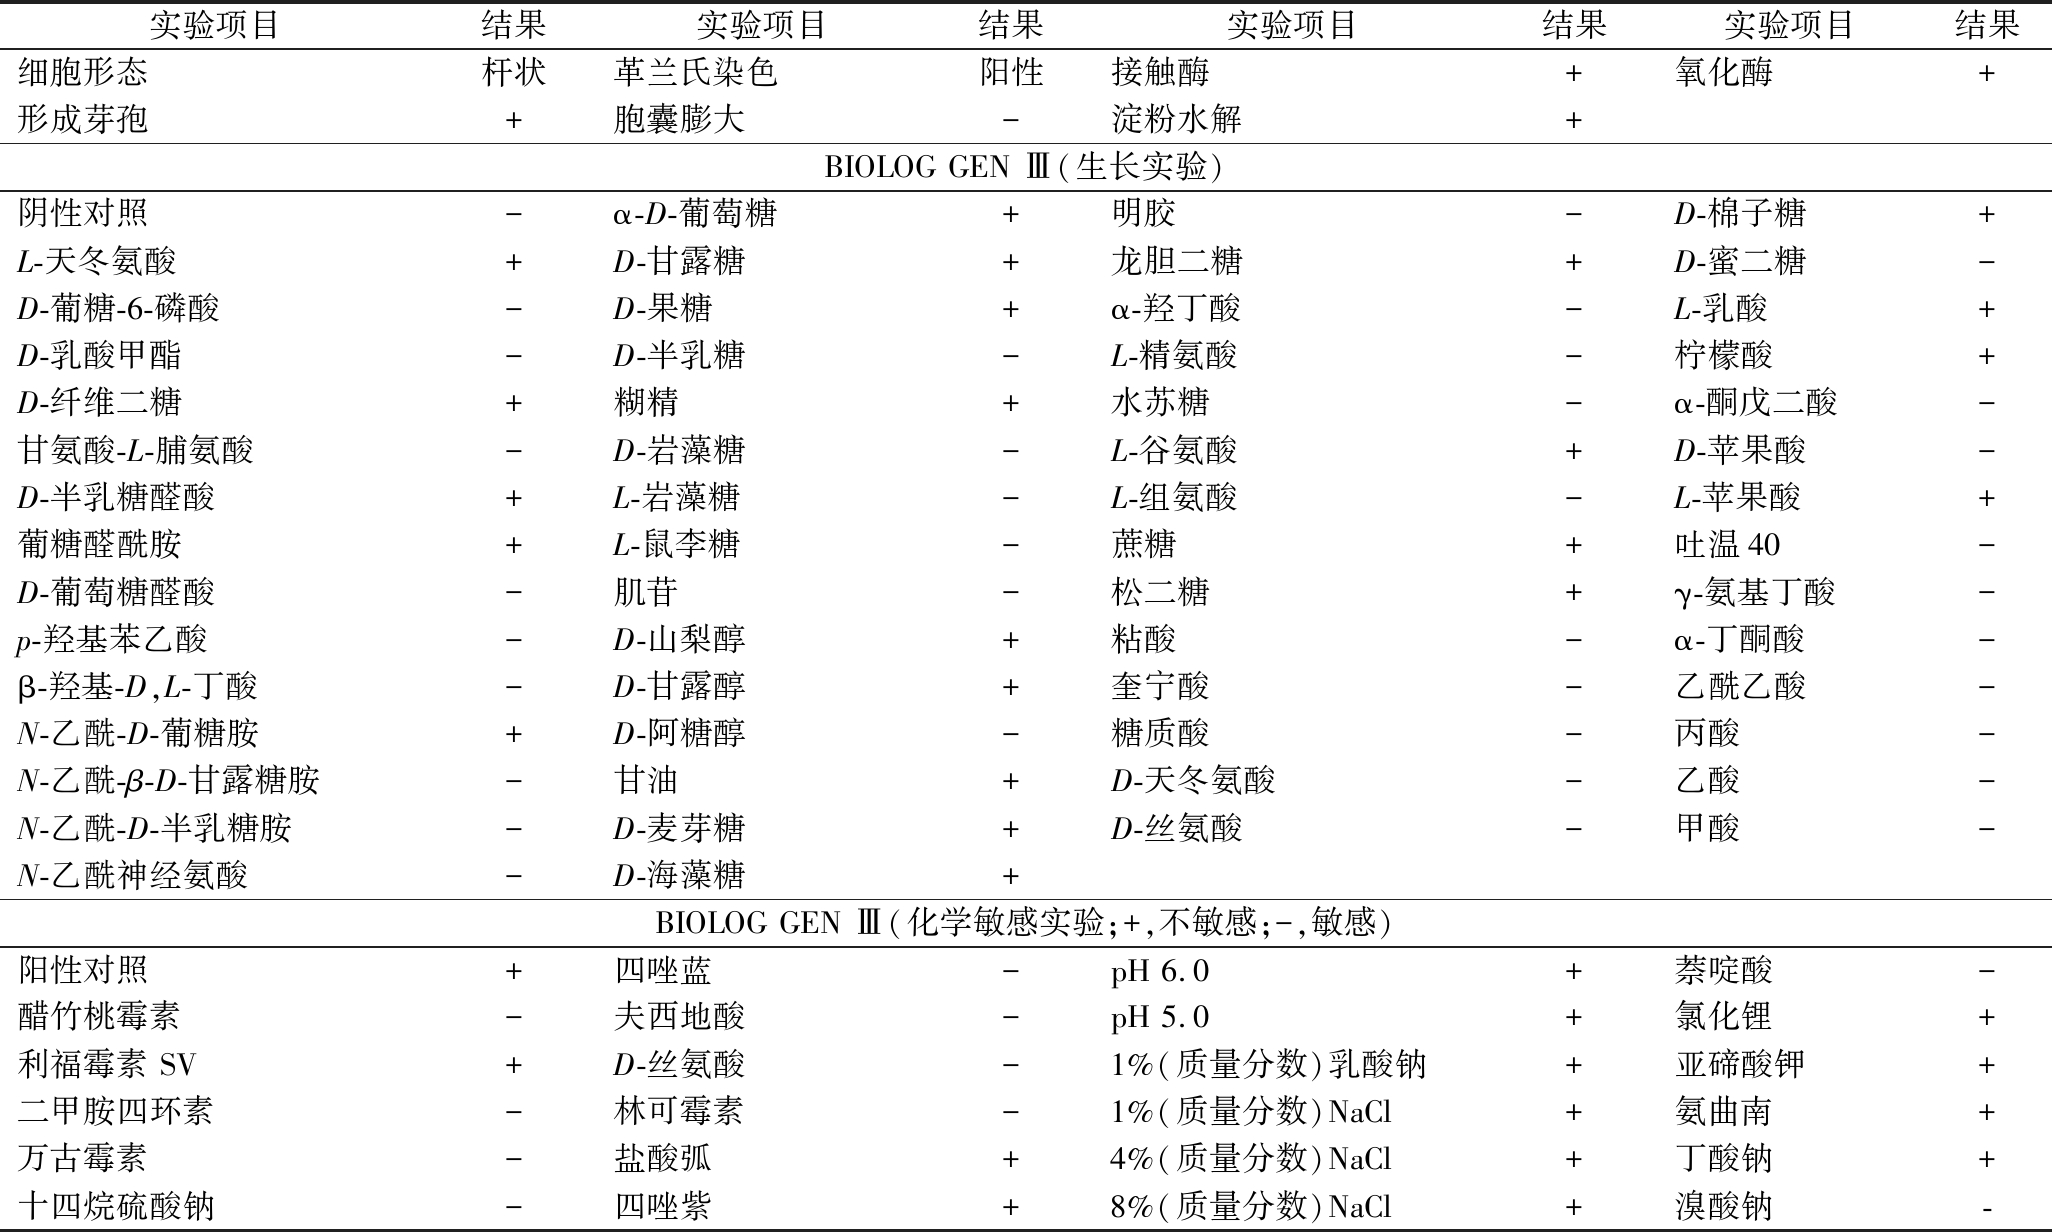
实验项目结果实验项目结果实验项目结果实验项目结果细胞形态杆状革兰氏染色阳性接触酶+氧化酶+形成芽孢+胞囊膨大-淀粉水解+BIOLOG GEN Ⅲ(生长实验)阴性对照-α-D-葡萄糖+明胶-D-棉子糖+L-天冬氨酸+D-甘露糖+龙胆二糖+D-蜜二糖-D-葡糖-6-磷酸-D-果糖+α-羟丁酸-L-乳酸+D-乳酸甲酯-D-半乳糖-L-精氨酸-柠檬酸+D-纤维二糖+糊精+水苏糖-α-酮戊二酸-甘氨酸-L-脯氨酸-D-岩藻糖-L-谷氨酸+D-苹果酸-D-半乳糖醛酸+L-岩藻糖-L-组氨酸-L-苹果酸+葡糖醛酰胺+L-鼠李糖-蔗糖+吐温40-D-葡萄糖醛酸-肌苷-松二糖+γ-氨基丁酸-p-羟基苯乙酸-D-山梨醇+粘酸-α-丁酮酸-β-羟基-D,L-丁酸-D-甘露醇+奎宁酸-乙酰乙酸-N-乙酰-D-葡糖胺+D-阿糖醇-糖质酸-丙酸-N-乙酰-β-D-甘露糖胺-甘油+D-天冬氨酸-乙酸-N-乙酰-D-半乳糖胺-D-麦芽糖+D-丝氨酸-甲酸-N-乙酰神经氨酸-D-海藻糖+BIOLOG GEN Ⅲ(化学敏感实验;+,不敏感;-,敏感)阳性对照+四唑蓝-pH 6.0+萘啶酸-醋竹桃霉素-夫西地酸-pH 5.0+氯化锂+利福霉素 SV+D-丝氨酸-1%(质量分数)乳酸钠+亚碲酸钾+二甲胺四环素-林可霉素-1%(质量分数)NaCl+氨曲南+万古霉素-盐酸弧+4%(质量分数)NaCl+丁酸钠+十四烷硫酸钠-四唑紫+8%(质量分数)NaCl+溴酸钠-
2.3.2 LfF-1菌株的分子鉴定
采用16S rRNA与gyrB基因线性拼接的序列构建了系统发育树(图4),LfF-1菌株与贝莱斯芽孢杆菌(Bacillus velezensis)聚为一支,自展值较高,并且明显区别于其他同属菌株,据此可将菌株LfF-1归类为贝莱斯芽孢杆菌。贝莱斯芽孢杆菌原本是从解淀粉芽孢杆菌分出的一个亚种,两者的生理生化特性相近[16],因此单纯利用“代谢指纹”并不能将它们有效区分开。从图4系统发育树可以看出,采用16S rRNA与gyrB基因联合建树的方法,可以将亲缘关系相近的不同亚种(枯草芽孢杆菌、解淀粉芽孢杆菌与贝莱斯芽孢杆菌)有效分离,实验结果进一步验证了该方法的有效性。
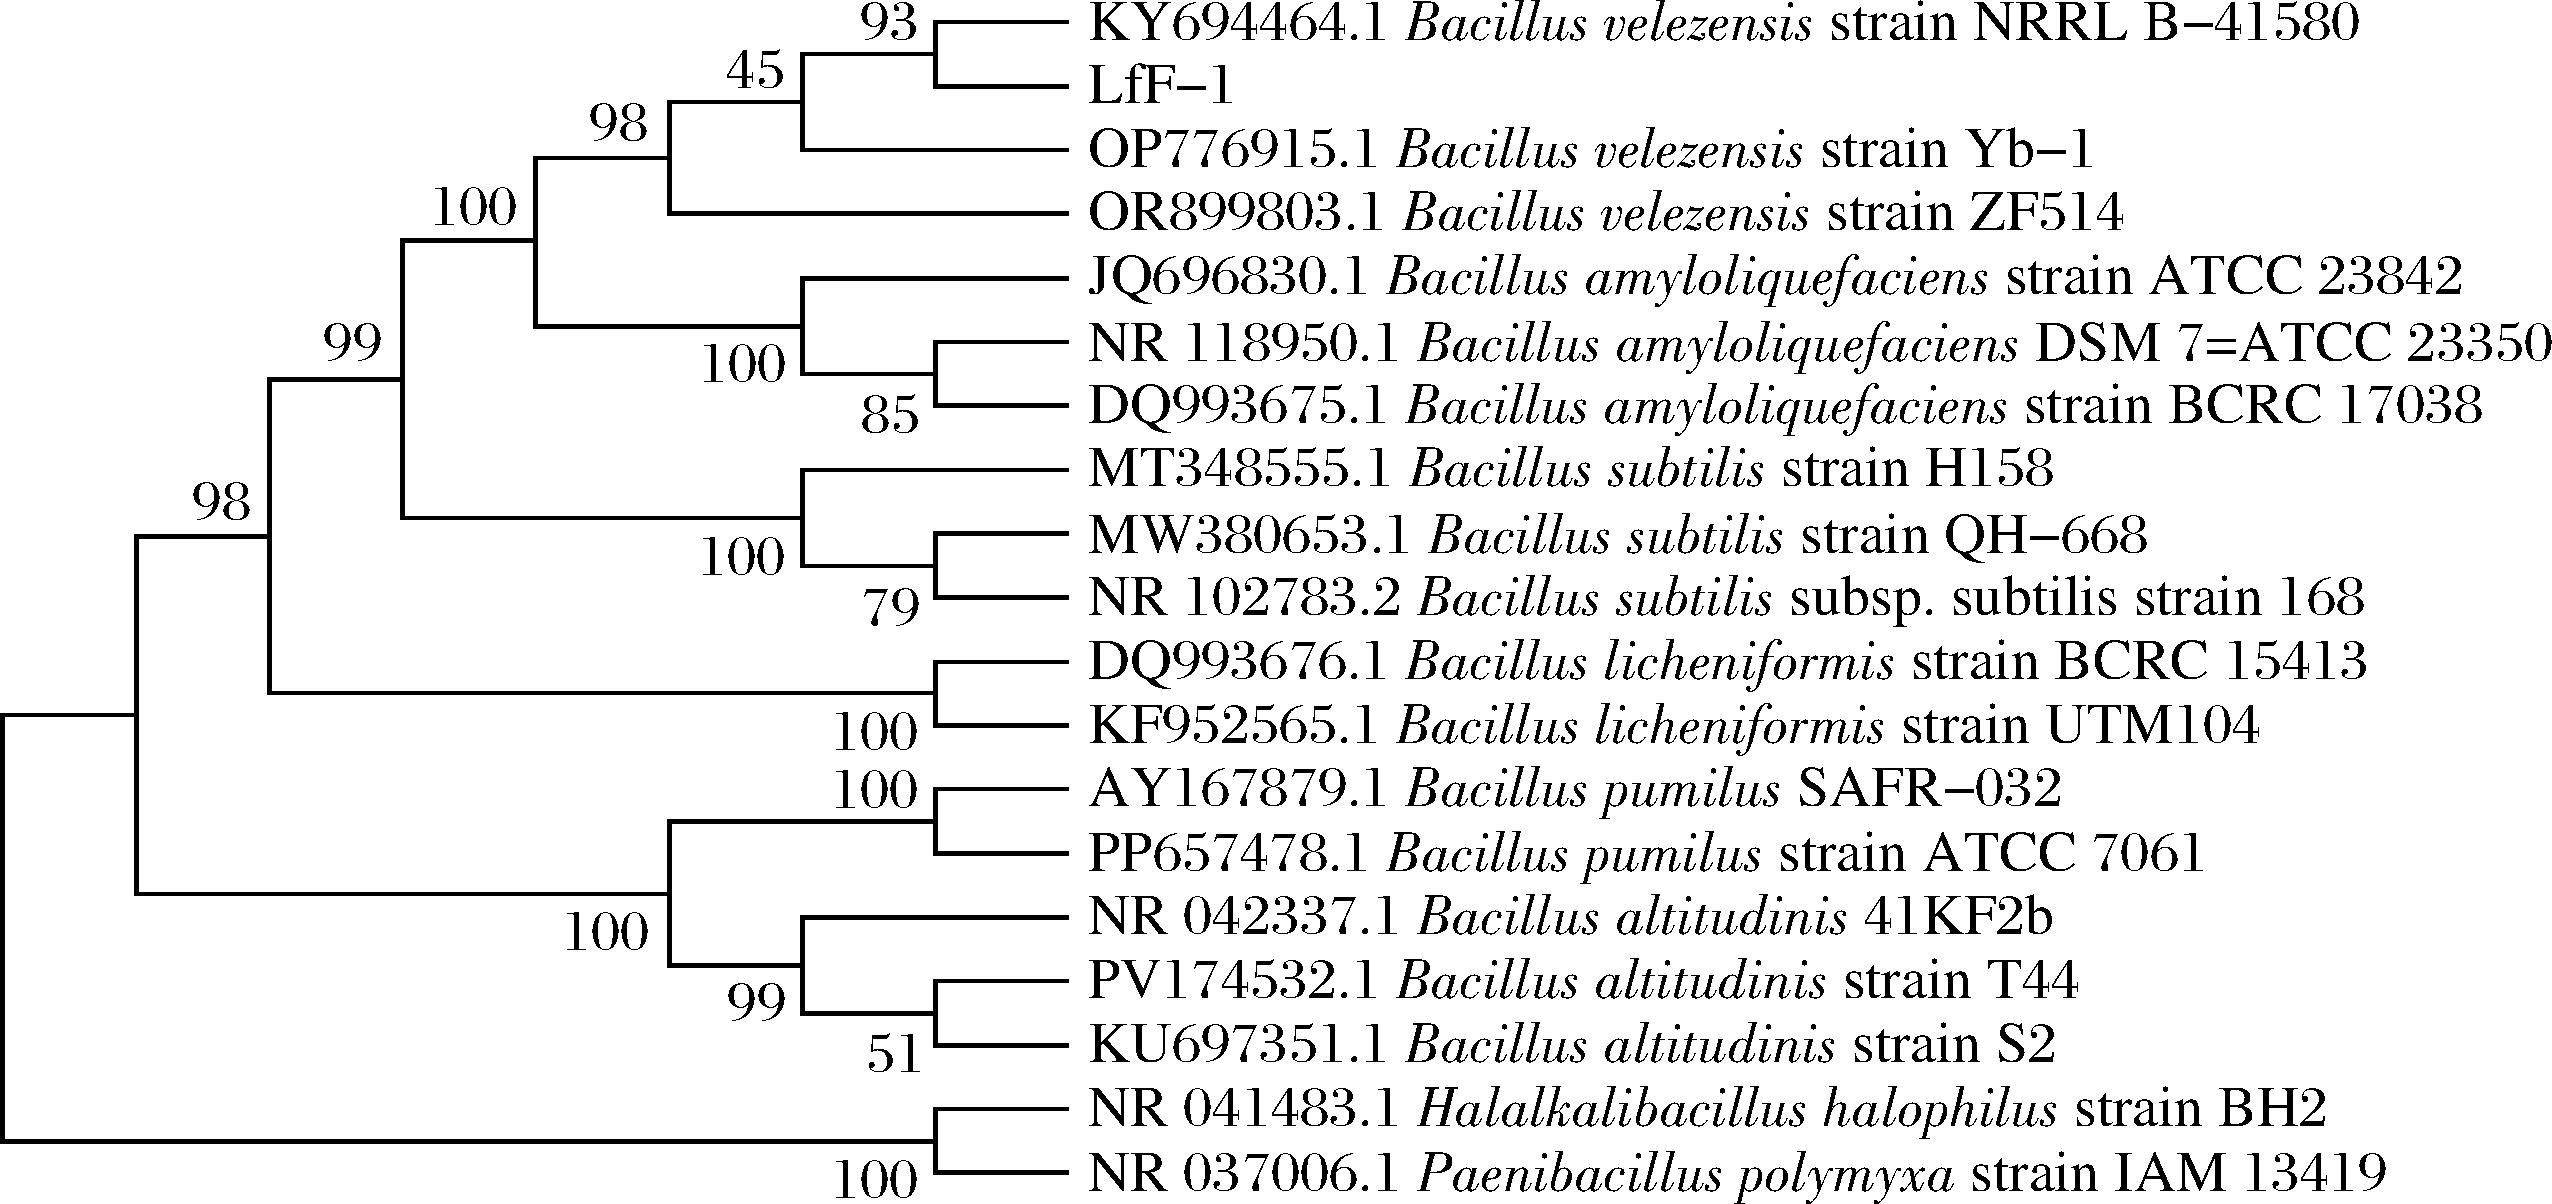
图4 LfF-1菌株基于16S rRNA与 gyrB 基因序列的系统发育树
Fig.4 Phylogenetic tree of LfF-1 strain based on 16S rRNA and gyrB gene sequences
2.4 LfF-1菌株发酵产酶培养基的优化
2.4.1 碳源对菌株发酵产蛋白酶的影响
考察了不同碳源对LfF-1菌株发酵产蛋白酶的影响(图5-a)。实验结果表明,该菌株可以利用常见碳源发酵产蛋白酶,但不同碳源的发酵效果存在显著差异(P<0.05),以乳糖作为唯一碳源时菌株发酵产蛋白酶的效果最佳。培养基中乳糖浓度与菌株发酵酶活力呈现出典型的钟形变化曲线(图5-b),乳糖浓度较低时,菌株发酵酶活力显著偏低,这应该是碳源不足所致;当乳糖质量浓度超过40 g/L时,菌株发酵酶活力会随之下降,这是因为碳源浓度过高导致酸的积累,培养基pH下降影响了酶的合成。综合以上结果可初步确定该菌株发酵产酶的碳源为乳糖,适宜质量浓度在30~40 g/L。
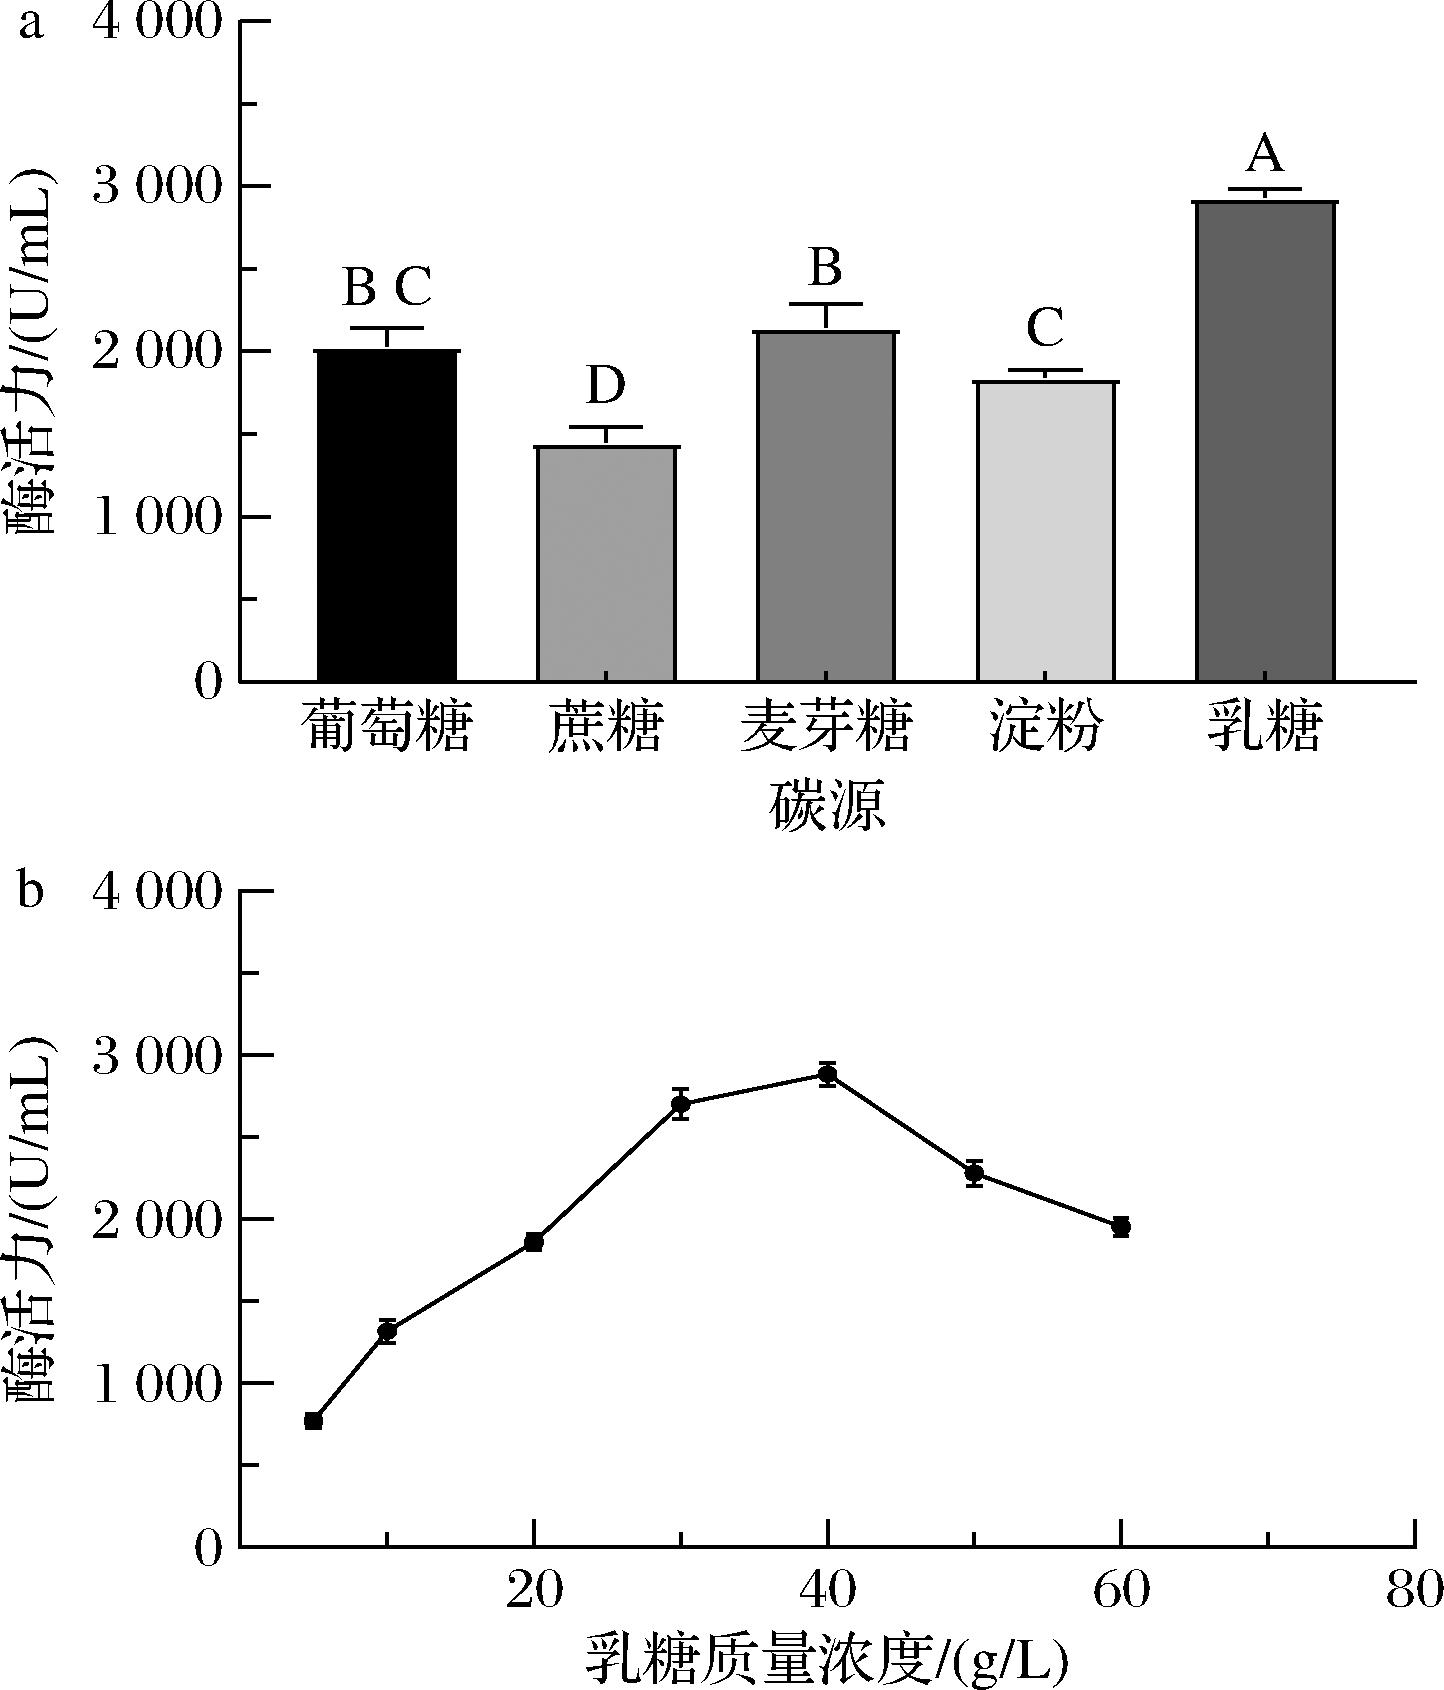
a-碳源;b-乳糖质量浓度
图5 不同碳源及乳糖质量浓度对LfF-1菌株发酵产蛋白酶的影响
Fig.5 Effects of different carbon sources and lactose concentration on protease production by LfF-1 strain
注:不同大写字母代表组间结果存在显著差异(P<0.05)(下同)。
2.4.2 氮源对菌株发酵产酶的影响
考察了不同氮源对LfF-1菌株发酵产蛋白酶的影响(图6-a)。当以氯化铵为唯一氮源时,该菌株几乎不合成蛋白酶,这一现象与文献[23]报道结果较为一致,推测与蛋白酶的诱导合成机制有关。不同有机氮源的利用效率也存在着显著差异(P<0.05),牛肉膏与黄豆粉发酵酶活力较高,显著优于另外2种有机氮源,这应该与此类氮源中丰富的生长因子(如B族维生素)有关,表明该菌株发酵产酶对于生长因子有特殊需求[24]。此外,牛肉膏浓度对菌体发酵产酶有显著的影响(图6-b),培养基中高浓度的牛肉膏对菌体发酵产酶表现出抑制效果,根据实验确定牛肉膏的适宜质量浓度在20 g/L附近。
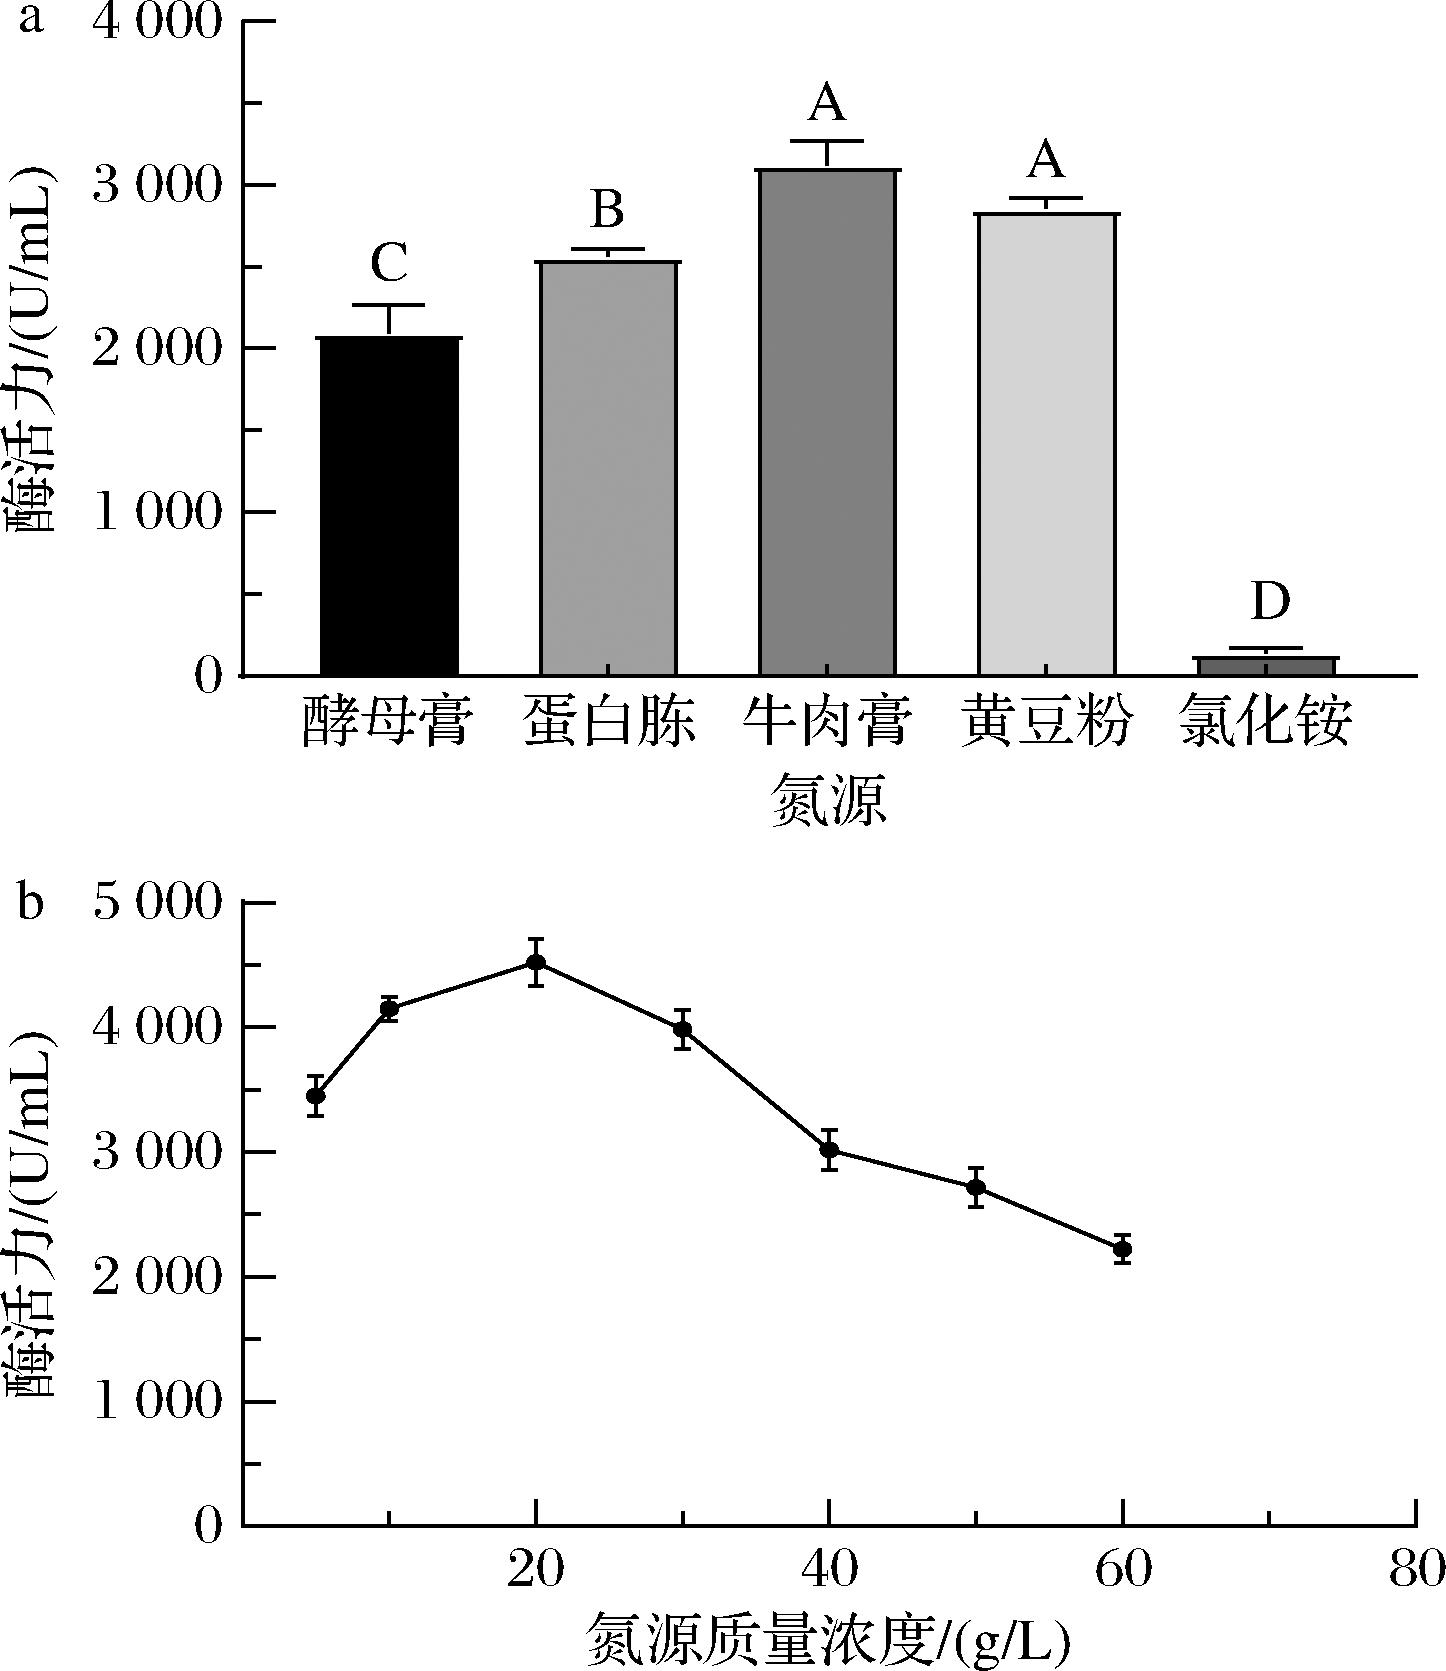
a-氮源;b-氮源质量浓度
图6 不同氮源及氮源质量浓度对LfF-1菌株发酵产蛋白酶的影响
Fig.6 Effects of different nitrogen sources and concentration on protease production by LfF-1 strain
2.4.3 无机盐对菌株发酵产酶的影响
如图7-a所示,培养基中添加磷酸盐(尤其是KH2PO4)可以显著提高该菌株的发酵酶活力(P<0.05),这应该与磷酸盐在发酵过程中稳定培养基pH及促进能量代谢的作用有关;根据实验结果可确定培养基中KH2PO4的适宜添加量在5 g/L左右(图7-b)。研究还发现,在发酵培养基中强化Mn2+、Zn2+、Fe3+等无机盐会导致该菌株发酵酶活力显著降低(P<0.05)。这与LfF-1蛋白酶属于金属酶的性质相符。
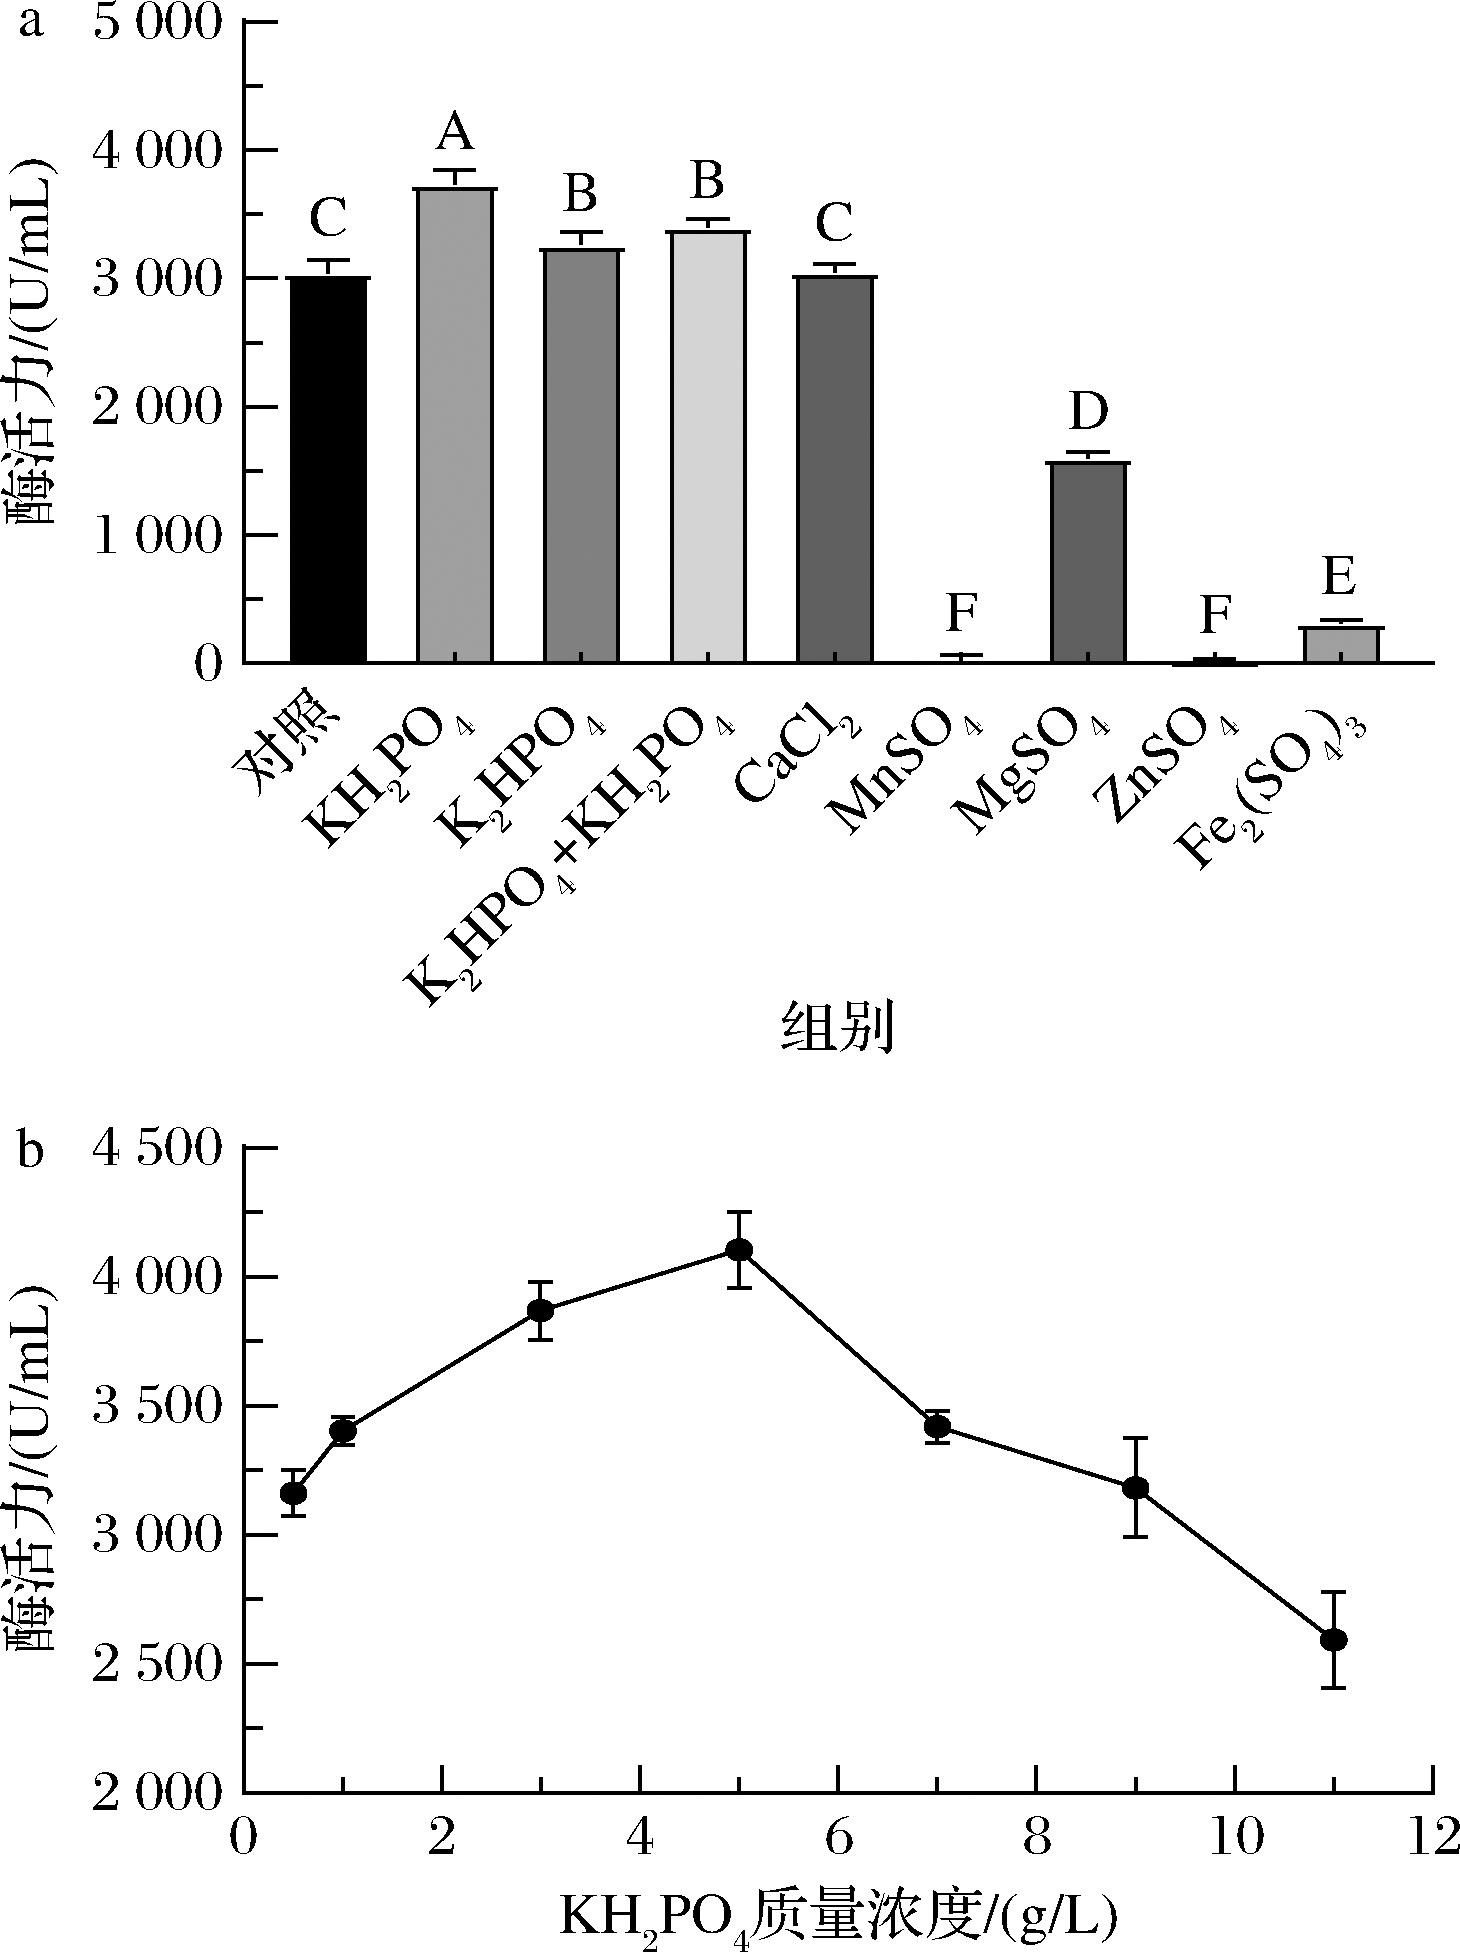
a-无机盐;b-无机盐质量浓度
图7 不同无机盐及无机盐质量浓度对LfF-1菌株发酵产蛋白酶的影响
Fig.7 Effects of different inorganic salt and concentration on protease production by LfF-1 strain
2.4.4 麸皮添加量对菌株发酵产酶的影响
麸皮中含有丰富的维生素等生长因子,是工业发酵中常用的生长因子补充剂[29],分析了发酵培养基中添加麸皮对菌株发酵产蛋白酶的影响(图8)。结果表明,在原发酵培养基中添加麸皮可显著提高菌株的发酵酶活力(P<0.05),其适宜添加量在30 g/L左右。实验结果进一步验证了生长因子对该菌株发酵产酶的促进作用。
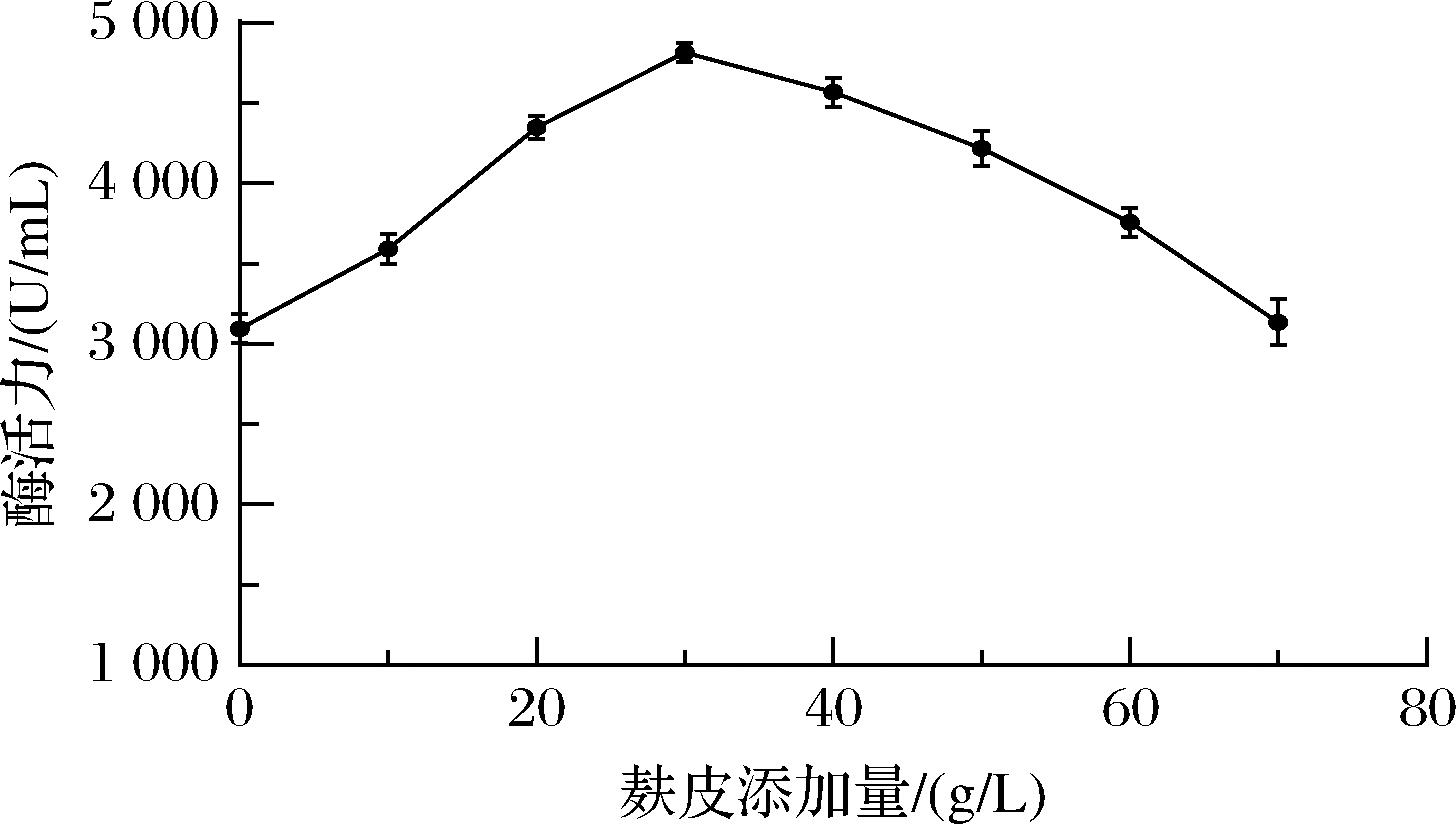
图8 麸皮添加量对LfF-1菌株发酵产蛋白酶的影响
Fig.8 Effects of bran addition on protease production by LfF-1 strain
2.4.5 培养基pH对菌株发酵产酶的影响
如图9所示,该菌株蛋白酶的合成代谢对培养基pH的变化较敏感,当培养基的pH<7.5或pH>8.5时,菌株的发酵酶活力显著偏低(P<0.05),表明该菌株在弱碱性环境中更利于产酶,这一特性可能与菌株在罗非鱼肠道(pH值约7.2~7.8)中的长期适应性进化有关。根据实验可确定该菌株适宜的发酵培养基pH值在7.0~8.5。
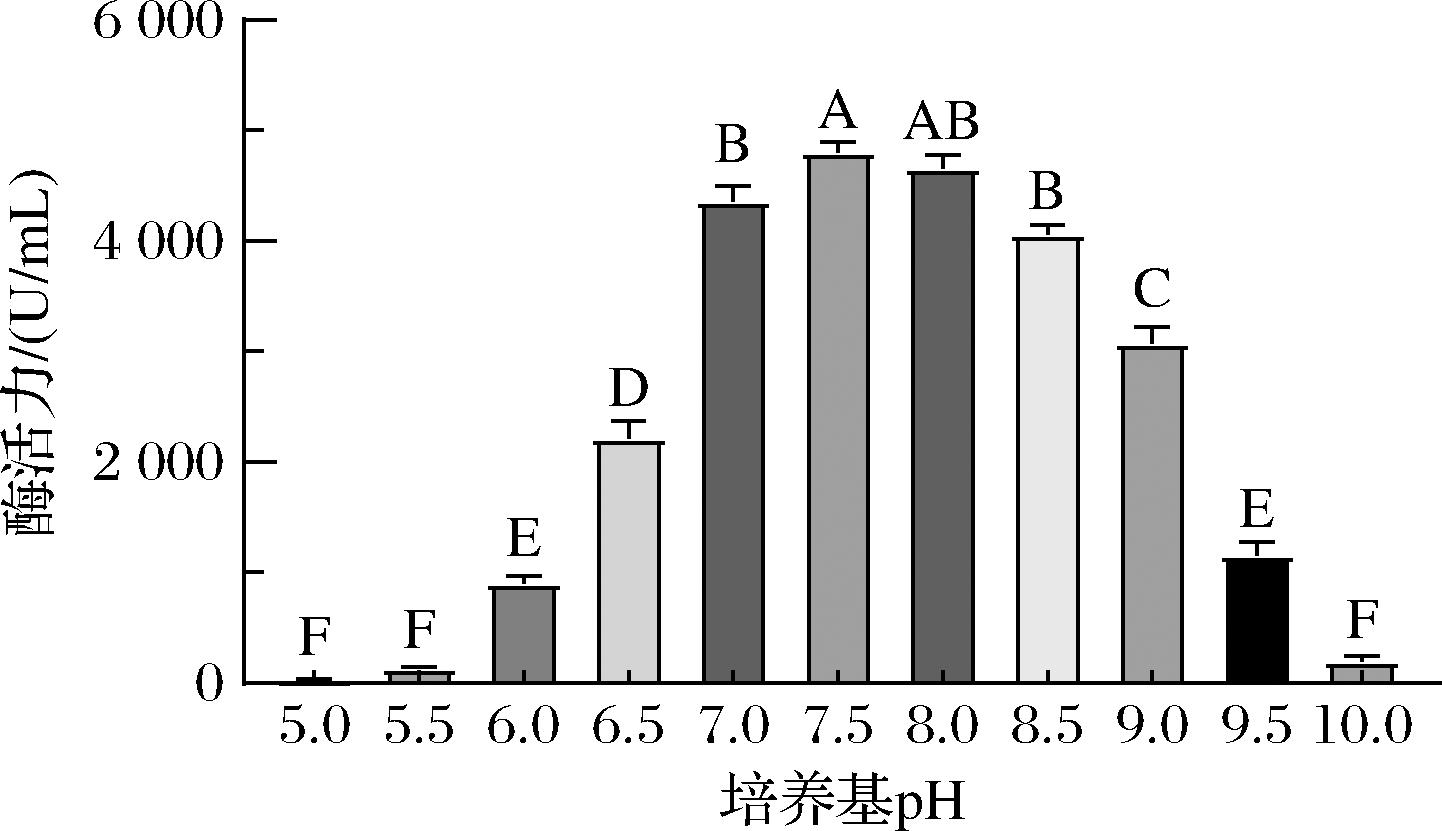
图9 培养基pH对LfF-1菌株发酵产蛋白酶的影响
Fig.9 Effects of medium pH on protease production by LfF-1 strain
2.4.6 发酵培养基的响应面优化
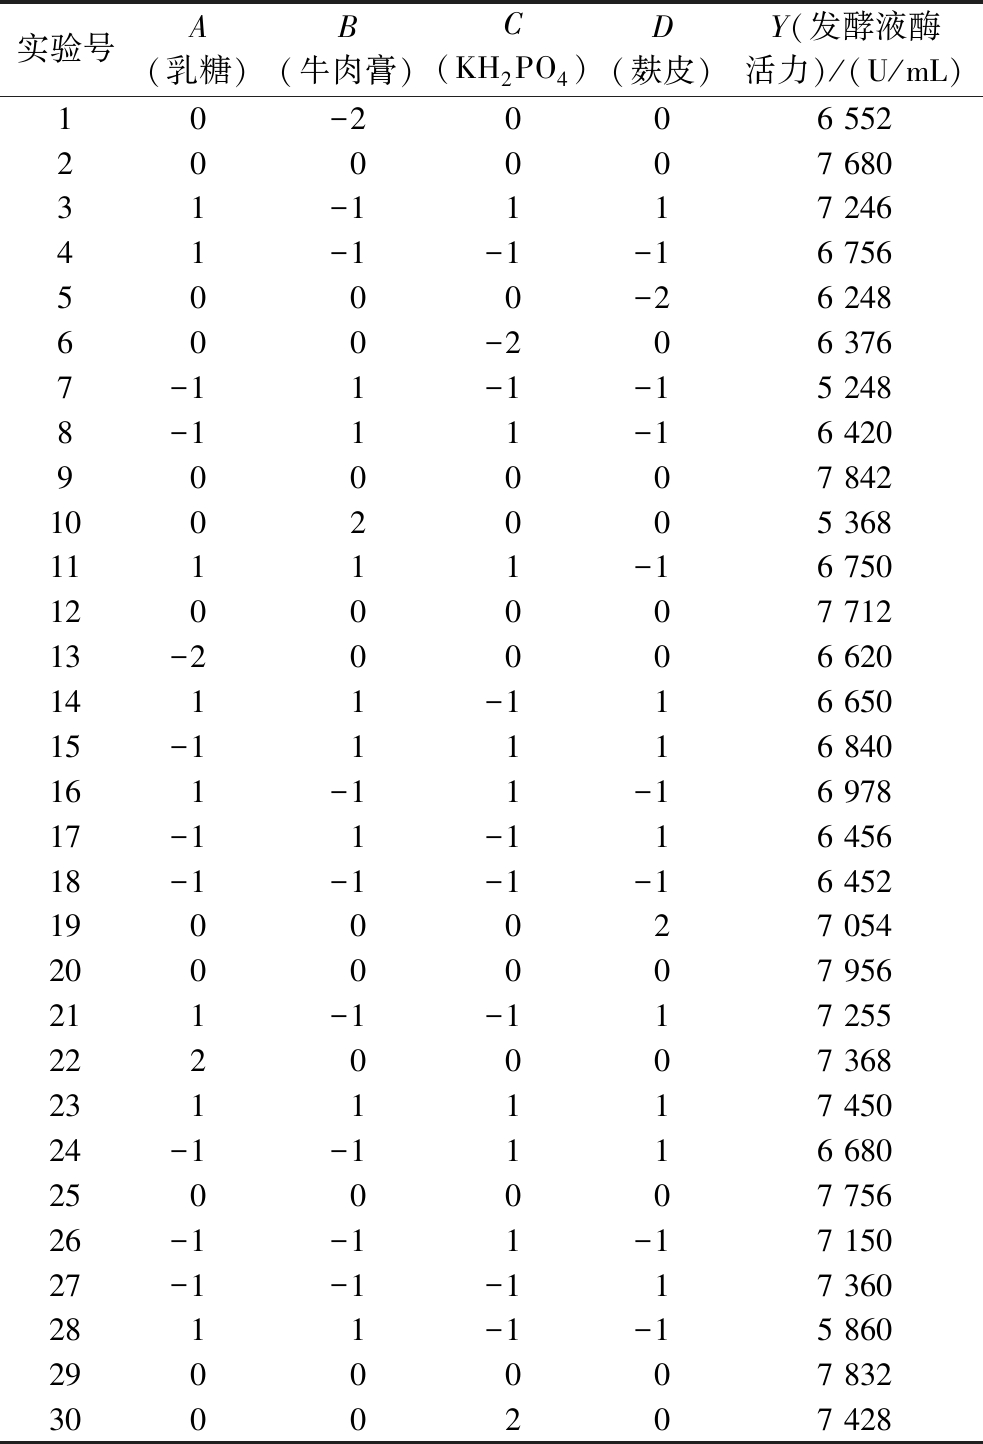
在单因素试验的基础上,采用中心组合设计对培养基的配方进行了优化试验,其试验设计及结果如表5所示。运用Design Expert12.0软件对表中结果进行回归分析,可以得到发酵液酶活力(Y)相对于乳糖、牛肉膏、KH2PO4、麸皮浓度的数学模型(因素采用编码值):
Y=7 796.33+159.79A-273.79B+232.54C+247.29D+188.44BC+119.56BD-155.44CD-184.72A2-443.22B2-207.72C2-270.47D2
表5 中心组合实验设计与结果
Table 5 Experiment design and results of central composite design
实验号A(乳糖)B(牛肉膏)C(KH2PO4)D(麸皮)Y(发酵液酶活力)/(U/mL)10-2006 552200007 68031-1117 24641-1-1-16 7565000-26 248600-206 3767-11-1-15 2488-111-16 420900007 8421002005 36811111-16 7501200007 71213-20006 6201411-116 65015-11116 840161-11-16 97817-11-116 45618-1-1-1-16 4521900027 0542000007 956211-1-117 2552220007 3682311117 45024-1-1116 6802500007 75626-1-11-17 15027-1-1-117 3602811-1-15 8602900007 8323000207 428
对回归模型及中心组合实验结果进行方差分析(表6),结果显示回归模型高度显著(P<0.000 1),失拟项不显著(P=0.083 4>0.05),模型的R2达到0.97,说明模型拟合度极佳,能有效解释响应变量(Y)的变化。对各因素项的分析可以看出, A、B、C、D 4个因素的一次项与二次项对菌株的发酵产酶都有显著影响(P<0.05);B、C、D 3个因素之间存在显著的交互作用。
表6 中心组合实验结果的方差分析
Table 6 Analysis of variance(ANOVA) of the experimental results of central composite design
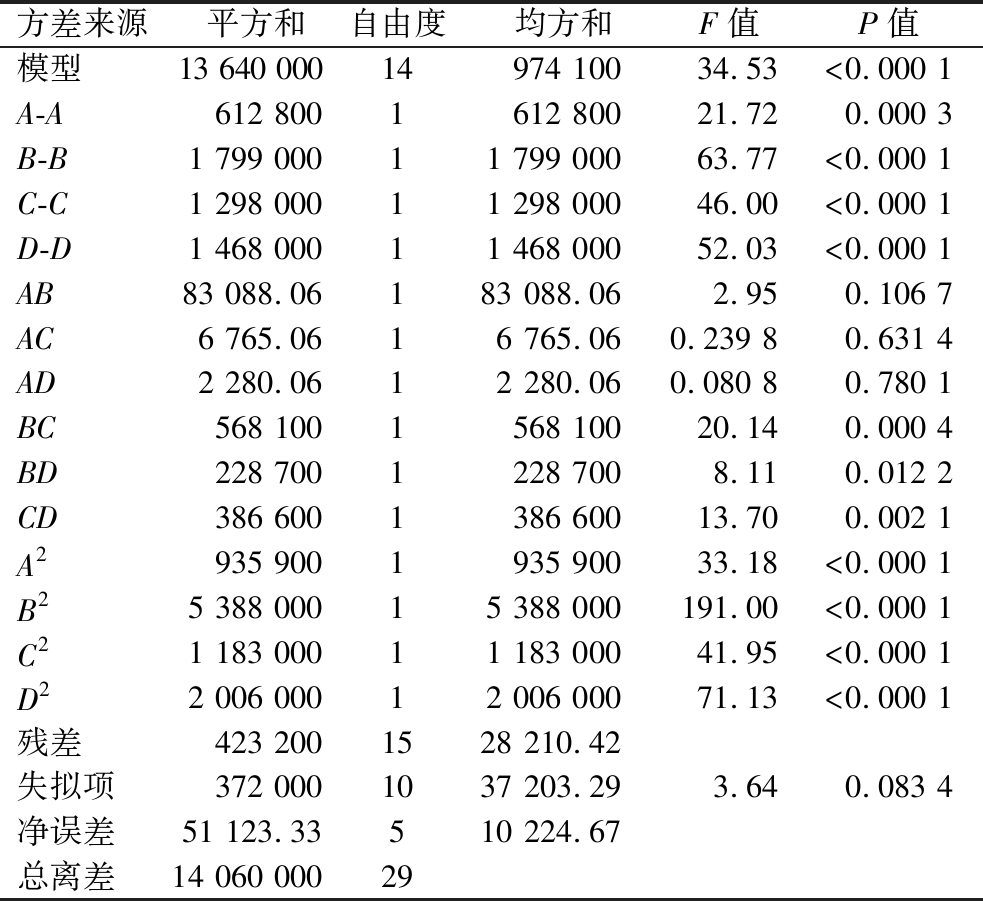
方差来源平方和自由度 均方和 F值P值模型13 640 00014974 10034.53<0.000 1A-A612 8001612 80021.720.000 3B-B1 799 00011 799 00063.77<0.000 1C-C1 298 00011 298 00046.00<0.000 1D-D1 468 00011 468 00052.03<0.000 1AB83 088.06183 088.062.950.106 7AC6 765.0616 765.060.239 80.631 4AD2 280.0612 280.060.080 80.780 1BC568 1001568 10020.140.000 4BD228 7001228 7008.110.012 2CD386 6001386 60013.700.002 1A2935 9001935 90033.18<0.000 1B25 388 00015 388 000191.00<0.000 1C21 183 00011 183 00041.95<0.000 1D22 006 00012 006 00071.13<0.000 1残差423 2001528 210.42失拟项372 0001037 203.293.640.083 4净误差51 123.33510 224.67总离差14 060 00029
利用 Design Expert 12.0软件优化可确定该模型的最大响应值为7 936 U/mL,各因素的最佳取值分别为乳糖34.36 g/L,牛肉膏18.54 g/L,KH2PO4 5.40 g/L、麸皮33.20 g/L。对优化结果进行了验证实验,8次独立实验的平均结果为(7 862±104) U/mL,与模型预测值基本一致,说明上述拟合模型具有可靠性,优化所得发酵培养基具有实用性。
2.5 温度及发酵时间对菌株发酵产酶的影响
如图10-a所示,LfF-1菌株发酵产酶喜好相对较低的温度,其最适温度在27~33 ℃,当温度超过36 ℃会抑制蛋白酶的合成,导致发酵酶活力显著降低(P<0.05)。LfF-1菌株的低温产酶特性显著区别于陆源芽孢杆菌,如枯草芽孢杆菌、地衣芽孢杆菌的最适发酵温度通常在35 ℃以上[23,30]。这一现象可能与其海洋生物环境适应性密切相关。因罗非鱼肠道环境温度通常在25~30 ℃,长期进化压力可能驱动该菌株蛋白酶合成系统适应中低温条件[18-19]。LfF-1菌株的这一特性为开发低能耗发酵工艺提供了优势。
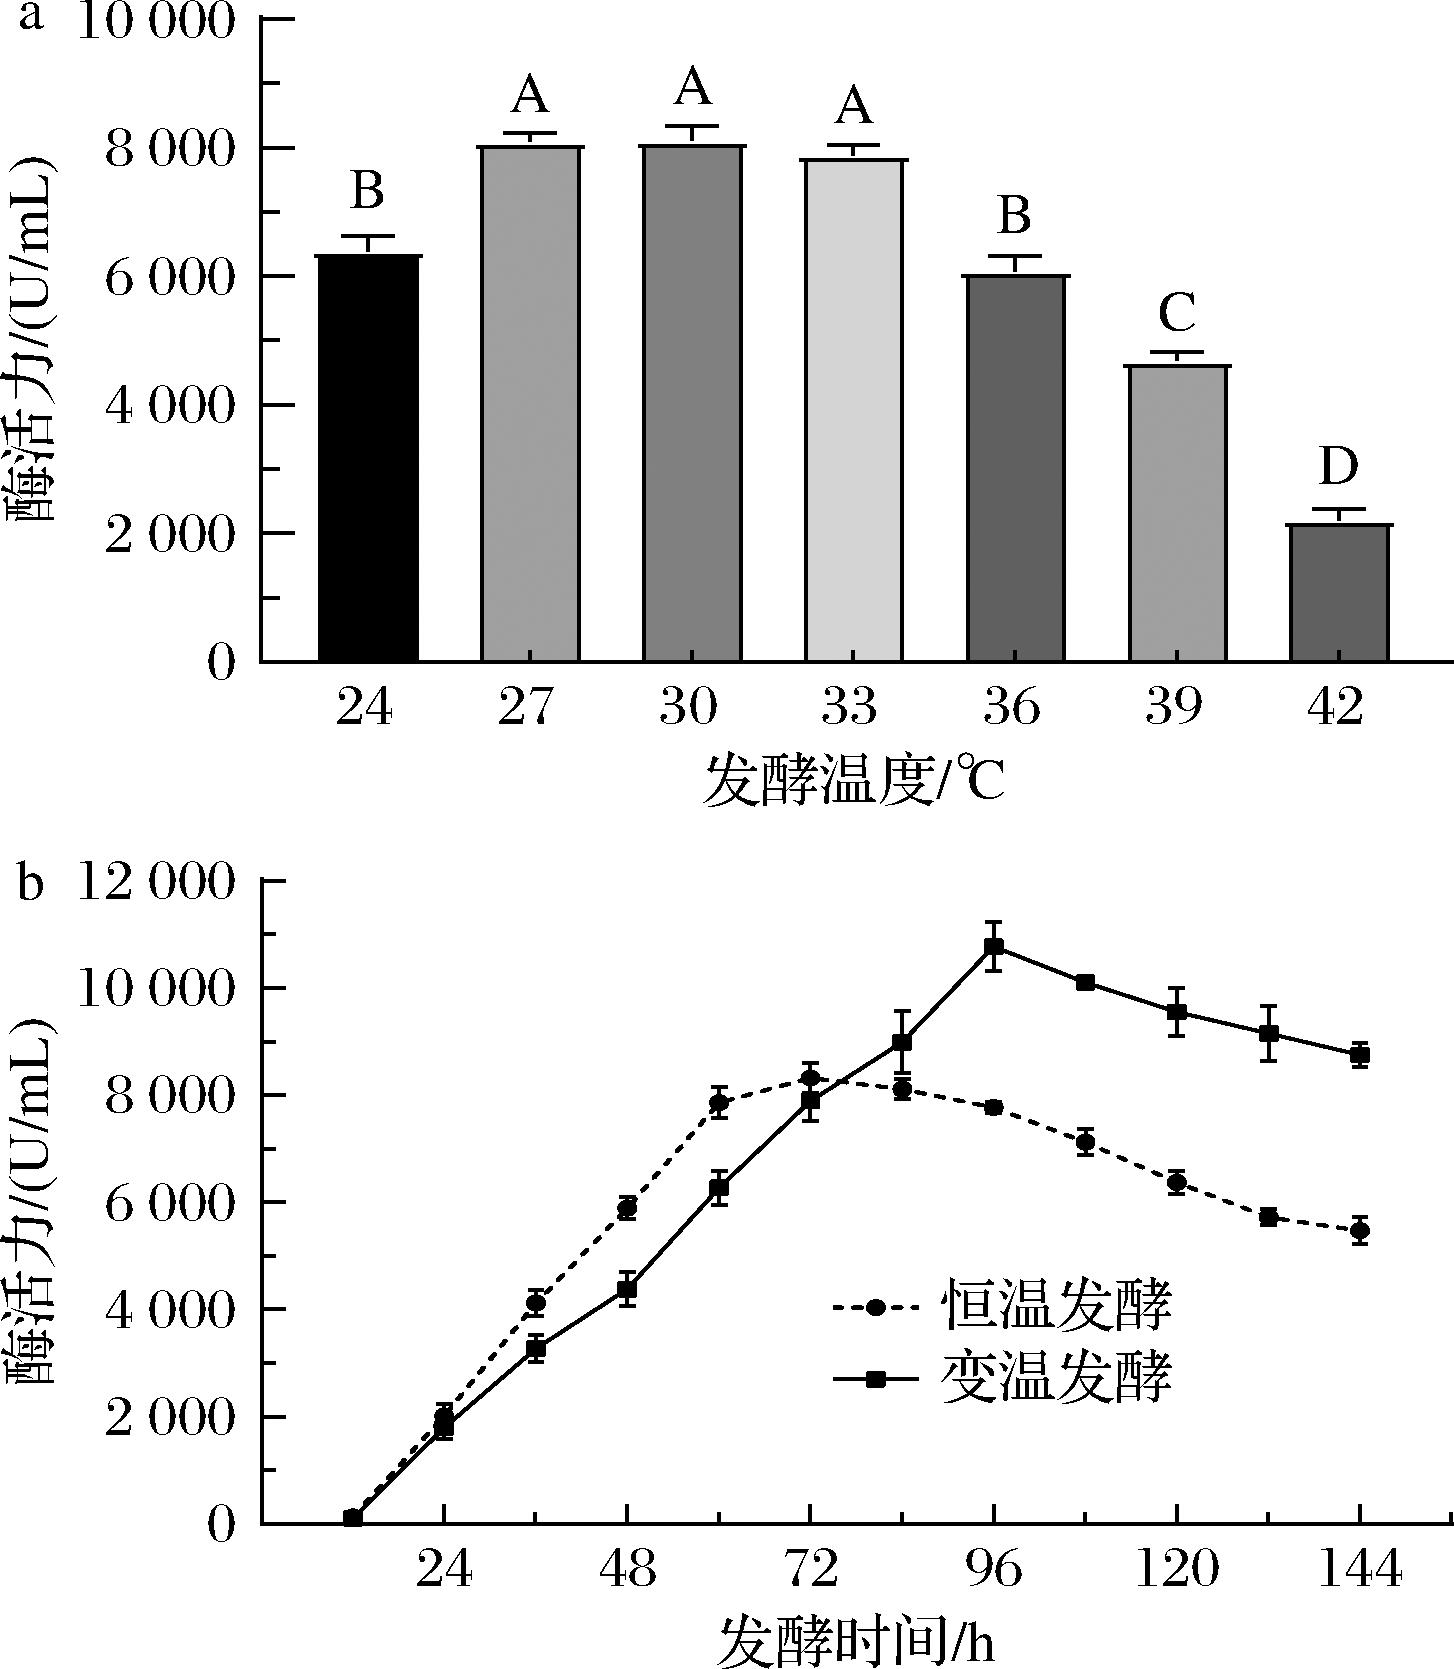
a-发酵温度;b-发酵时间
图10 发酵温度及时间对LfF-1菌株产蛋白酶的影响
Fig.10 Effects of fermentation temperature and time on protease production of Lff-1 strain
从该菌株发酵酶活力的变化趋势来看,LfF-1蛋白酶的合成是在菌体进入对数生长中期才启动,并一直延续到菌体的衰亡期,这是典型的滞后合成模式[31]。为了有效平衡菌体生长与产酶,考察了变温发酵模式对菌株产酶的影响(图10-b)。分段控制发酵温度可以较好地协调发酵前期菌体生长与发酵中后期的产酶,中后期适当降低发酵温度可以有效延缓菌体衰亡,从而延长了蛋白酶的合成期,发酵酶活力在96 h达到峰值,并得到显著提升(P<0.05)。
2.6 发酵工艺的小试与补料发酵
如图11所示,由于发酵罐供氧及传质效率显著优于摇瓶[31],LfF-1菌株在发酵罐中发酵产酶的速率显著优于摇瓶阶段,蛋白酶积累量在48 h就达到峰值,发酵液酶活力最大可达13 000 U/mL。与摇瓶发酵相比,时间缩短了44 h,产率提高了约30%。由于发酵罐中菌体生长及代谢非常旺盛,到发酵中期(24~48 h),培养基中氧气及营养物质的供应不足,导致菌体生长代谢受阻,过早凋亡;因此,在40 h后,培养基的pH就出现了上升的趋势。此外,由于菌体呼吸强度高,无菌空气流量较大,培养基的蒸发量大,发酵后期发酵罐中培养基体积较发酵初期大幅减少,发酵液的黏度显著增加,这些因素共同制约了菌体的代谢及酶的合成。
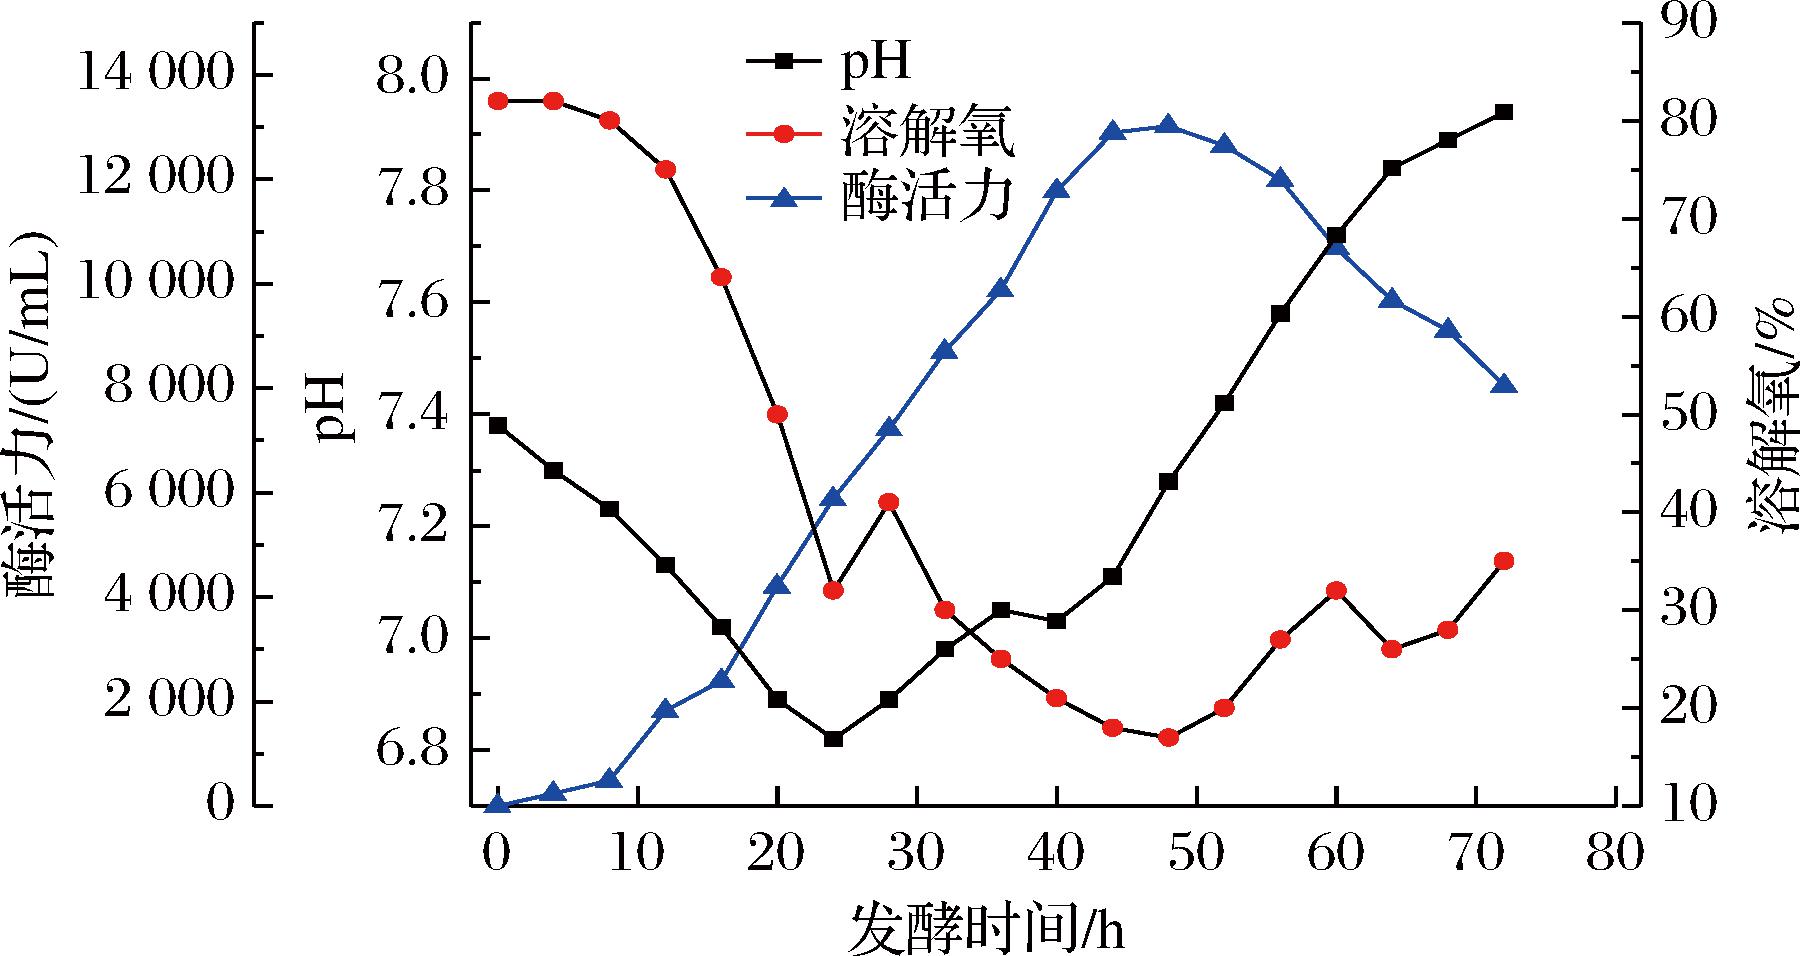
图11 小试阶段发酵工艺参数的变化曲线
Fig.11 Variation curve of fermentation process parameters in the small test
针对发酵罐发酵后期存在的问题,提出了补料发酵的改进方案,在调控发酵温度的同时向发酵罐中补充新鲜的培养基,及时补充发酵罐中营养物质,同时稀释发酵液以改善氧气的供给,其结果如图12所示。通过补料可以使菌体的衰亡期往后推迟约20 h(在60 h后培养基pH上升,溶氧量增加,表明菌体已开始衰亡),蛋白酶的合成时间也因此延长,在60 h达到峰值,最大酶活力可达到11 500 U/mL。虽然单位体积酶活力略低于分批发酵的水平,由于补料后单罐发酵液体积几乎是分批发酵的2倍,因此补料发酵酶的总产量比分批发酵可提高约76.9%。
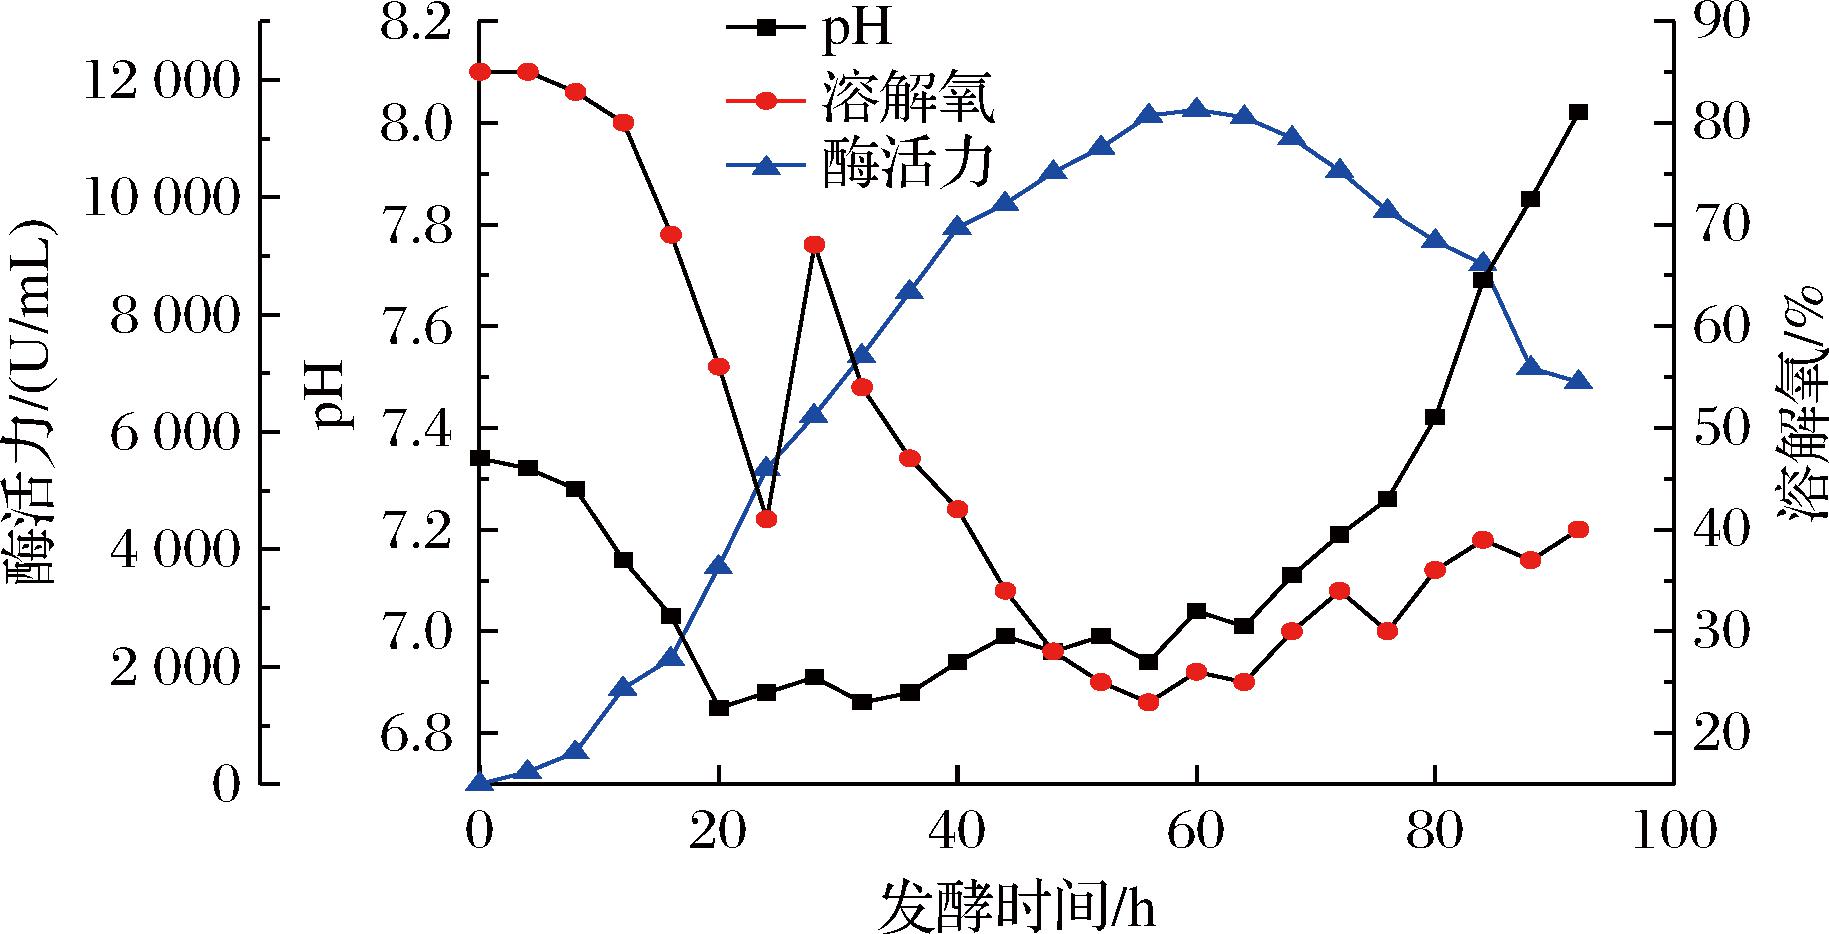
图12 补料发酵过程中工艺参数的变化曲线
Fig.12 Variation curve of process parameters during fed batch fermentation
3 结论与讨论
本研究从海产罗非鱼肠道中成功筛选并鉴定出1株高产金属蛋白酶的贝莱斯芽孢杆菌 LfF-1,该菌株所产蛋白酶具有耐盐、嗜碱及低温催化的优良特性,这些独特属性与其海洋鱼类肠道的特殊生存环境密切相关,也使其在强碱性、高盐等特殊工业场景中具备显著的应用潜力。通过单因素试验结合响应面法对发酵培养基进行系统优化,确定了最优组成为乳糖34.36 g/L、牛肉膏18.54 g/L、KH2PO4 5.40 g/L、麸皮33.20 g/L,初始pH 7.0~7.5,该配方能充分满足菌株生长与产酶需求,摇瓶发酵酶活力可达(7 862±104) U/mL,较初始筛选阶段提升了4.3倍。发酵条件研究表明,LfF-1菌株具有中低温产酶优势,最适产酶温度范围为27~33 ℃,温度高于36 ℃时会显著抑制蛋白酶合成,这一特性区别于陆源芽孢杆菌(如枯草芽孢杆菌、地衣芽孢杆菌)的高温产酶特性,推测与罗非鱼肠道长期稳定的中低温环境(25~30 ℃)适应性进化相关,为开发低能耗发酵工艺提供了天然优势。在5 L发酵罐小试中,采用优化培养基结合分段控温(0~24 h 33 ℃促进菌体生长,24 h后27 ℃延长产酶期)与补料工艺,成功将发酵周期缩短至60 h,酶活力峰值达11 500 U/mL,总产量较分批发酵提高76.9%,相较于已报道的深海细菌(约339.36 U/mL)[21]及贝莱斯芽孢杆菌 YB19(约370.03 U/mL)[29]等同类菌株,LfF-1的产酶能力优势显著,具备作为工业生产菌种的潜力。综合来看,贝莱斯芽孢杆菌LfF-1具有蛋白酶高产特性、中低温发酵优势及所产蛋白酶的极端环境适应性,可有效弥补当前商业化蛋白酶制剂的不足,优化后的发酵工艺为后续开发专用蛋白酶制剂奠定了坚实的菌种与技术基础。未来研究可进一步聚焦该蛋白酶的分离纯化与酶学性质系统解析,明确其极端环境适应性的分子机制,同时开展该蛋白酶在具体工业场景中的应用。
[1] Song P, Zhang X, Wang S H, et al.Microbial proteases and their applications[J].Frontiers in Microbiology, 2023, 14:1236368.
[2] Matkawala F, Nighojkar S, Kumar A, et al.Microbial alkaline serine proteases:Production, properties and applications[J].World Journal of Microbiology and Biotechnology, 2021, 37(4):63.
[3] Chen S Y, Maulu S, Wang J, et al.The application of protease in aquaculture:Prospects for enhancing the aquafeed industry[J].Animal Nutrition, 2023,16:105-121.
[4] Anbesaw M S, Worku G.Exploration of a novel protease from Phytolacca dodecandra (Endod) berries for potential application in detergent formulation[J].Journal of Surfactants and Detergents, 2024, 27(4):613-631.
[5] Alamnie G, Gessesse A, Andualem B.Production of surfactant-stable keratinolytic protease from B.subtilis ES5 and its application as a detergent additive[J].Biocatalysis and Agricultural Biotechnology, 2023,50:102750.
[6] Humaira, Deba F, Shakir H A, et al.Optimization of protease production using Bacillus velezensis through response surface methodology and investigating its applications as stain remover[J].Systems Microbiology and Biomanufacturing, 2024, 4(4):1313-1322.
[7] Zikiou A, Saci F, Fiala S, et al.Milk-clotting proteases from Onopordum macracanthum flowers:Purification, characterization, and potential applications in cheesemaking[J].Journal of Food Measurement and Characterization, 2025, 19 (7):4854-4865.
[8] Lermen A M, Clerici N J, Borchartt Maciel D, et al.Characterization and application of a crude bacterial protease to produce antioxidant hydrolysates from whey protein[J].Preparative Biochemistry &Biotechnology, 2022, 53(1):12-21.
[9] Kaur S, Huppertz T, Vasiljevic T.Plant proteases and their application in dairy systems[J].International Dairy Journal, 2024,154:105925.
[10] Khan Z, Shafique M, Jabeen N, et al.Protease from Bacillus subtilis ZMS-2:Evaluation of production dynamics through response surface methodology and application in leather tannery[J].Journal of King Saud University - Science, 2023,35(4):102643.
[11] Naimah P, Eka Legya F.A review of potential enzymes:Protease and keratinase for dehairing process as cleaner and eco-friendly leather processing[J].Leather and Footwear Journal, 2023, 23(4):267-278.
[12] Becker Da Silva C, Poll Moraes G, Godoy Hoffmann R, et al.Production of bacterial protease via solid-state cultivation with agro-industrial by-products and eco-friendly perspectives of enzyme application[J].Clean Technologies and Environmental Policy, 2025, 27(5):2029-2042.
[13] Sujitha P, Shanthi C.Importance of enzyme specificity and stability for the application of proteases in greener industrial processing-a review[J].Journal of Cleaner Production, 2023, 425:138915.
[14] Sujitha P, Shanthi C.Insights into substrate specificity of proteases for screening efficient dehairing enzymes[J].International Journal of Biological Macromolecules, 2021, 172:360-370.
[15] Ali Y, Ahmad B, Jogezai N, et al.Screening and characterization of thermolabile protease and alkaliphilic lipase producing psychrotrophic Stenotrophomonas sp.and Pseudomonas sp.[J].Sarhad Journal of Agriculture, 2019,35(3).DOI:10.17582/journal.sja/2019/35.3.770.781.
[16] Lu J, Zhao Y, Hu R, et al.Screening and characteristics of marine Bacillus velezensis Z-1 protease and its application of enzymatic hydrolysis of mussels to prepare antioxidant active substances[J].Molecules, 2022, 27(19):6570.
[17] Khadka S, Adhikari S, Thapa A, et al.Screening and optimization of newly isolated thermotolerant Lysinibacillus fusiformis strain SK for protease and antifungal activity[J].Current Microbiology, 2020,77(8):1558-1568.
[18] Gao R C, Zhou J, Leng W J, et al.Screening of a Planococcus bacterium producing a cold-adapted protease and its application in low-salt fish sauce fermentation[J].Journal of Food Processing and Preservation, 2020, 44(8):e14625.
[19] Guo C C, Sun C M, Wu S M.Screening and characterization of proteases produced by deep-sea cold seep bacteria[J].Journal of Oceanology and Limnology, 2022, 40(2):678-689.
[20] Zeyneb N, Zohra E K, Hayat D, et al.Screening and optimization of alkaline protease production from bacteria isolated from seawater in the north west of Algeria[J].Egyptian Academic Journal of Biological Sciences, C Physiology &Molecular Biology, 2023,15(1):85-96.
[21] 冯璨, 马香, 刘柱, 等.海南近海水域产碱性蛋白酶菌株的分离筛选及发酵条件优化[J].微生物学通报, 2022, 49(10):4291-4304.Feng C, Ma X, Liu Z, et al.Isolation and screening of alkaline protease-producing strains from Hainan offshore areas and optimization of the fermentation conditions[J].Microbiology China, 2022, 49(10):4291-4304.
[22] Colak D N.Alkaline protease producing bacterium isolated from gut waste of Salmo trutta:Purification and characterization[J].Biology Bulletin, 2021, 48(S2):S1-S11.
[23] Ramkumar A, Sivakumar N, Gujarathi A M et al.Production of thermotolerant, detergent stable alkaline protease using the gut waste of Sardinella longiceps as a substrate:Optimization and characterization[J].Scientific Reports, 2018, 8:12442.
[24] Armada C D, Simora R M C.Optimization and functional properties of a protease from a fish gut isolate Pseudomonas sp.PD14 grown on fish processing wastes substrate[J].Philippine Journal of Science, 2022, 151(1):95-105.
[25] Dhayalan A, Velramar B, Govindasamy B, et al.Isolation of a bacterial strain from the gut of the fish, Systomus sarana, identification of the isolated strain, optimized production of its protease, the enzyme purification, and partial structural characterization[J].Journal of Genetic Engineering and Biotechnology, 2022, 20(1):24.
[26] Champasri C, Phetlum S, Pornchoo C.Diverse activities and biochemical properties of amylase and proteases from six freshwater fish species[J].Scientific Reports, 2021,11:5727.
[27] 傅奇, 林俊杰, 冯亚栋, 等.16S与gyrB基因联合建树快速鉴定一株解淀粉芽胞杆菌[J].食品与发酵工业, 2020,46(12):116-120.Fu Q,Lin J J,Feng Y D,et al.Identification of a Bacillus amyloliquefaciens strain using a phylogenetic tree based on 16S and gyrB gene sequences[J].Food and Fermentation Industries, 2020, 46(12):116-120.
[28] Avc A, Demir S, Akçay F A.Production, properties and some applications of protease from alkaliphilic Bacillus sp.EBTA6[J].Preparative Biochemistry &Biotechnology, 2021, 51(8):803-810.
[29] 郭艳霞, 贾丽艳, 畅盼盼, 等.响应面法优化贝莱斯芽孢杆菌YB19产中性蛋白酶发酵条件[J].中国调味品, 2021, 46(4):16-20;37.Guo Y X, Jia L Y, Chang P P, et al.Optimization of fermentation conditions for neutral protease produced by Bacillus velezensis YB19 by response surface methodology[J].China Condiment,2021, 46(4):16-20;37.
[30] Espoui A H, Larimi S G, Darzi G N.Optimization of protease production process using bran waste using Bacillus licheniformis[J].Korean Journal of Chemical Engineering, 2022, 39(3):674-683.
[31] Yang D D, Tian J W, Yang C L, et al.Optimization of alkaline protease production from Bacillus licheniformis D5 in submerged fermentation[J].Indian Journal of Experimental Biology, 2024,62(3):214-223.