酱油是一种以大豆、小麦为主要原料,经过微生物发酵而制成的液体调味品。 酱油颜色红润、风味独特,被广泛应用于全球消费者的日常饮食中[1]。 酱油的风味较为复杂,主要体现为甜、鲜、咸等。 近年来厚味也被认为是酱油风味中一种重要的品质,可使酱油在口腔中呈现出的浓郁饱满、层次丰富的复合风味[2]。 因此,具有较好厚味的酱油被认为具有较强的市场竞争力[3-4]。 酱油的风味主要来源于发酵过程中产生的多种化合物(如氨基酸、有机酸、醇类、酯类等),这些成分共同构成了酱油独特的风味。 酱油的化学组成一般可以分为挥发性物质和非挥发性物质[5]。 其中,有机酸占非挥发性物质中的主要部分,其与高盐稀态发酵酱油的风味息息相关[6]。 酱油中有机酸主要以乳酸、琥珀酸为主,其中乳酸可以提高酱油风味,而琥珀酸具有贝类特殊滋味可以改善酱油风味[7]。 琥珀酸对于提高酱油的厚味有重要影响,是酱油厚味来源的物质之一。 它能补充清爽鲜味以丰富风味层次,还可增强口腔中的味觉存在感,辅助强化酱油的醇厚感[8]。
琥珀酸的生产方法主要有化学合成法、生物转化法以及微生物发酵法。 和其他方法相比,微生物发酵法具有低成本、绿色环保、节约大量能源的优势[9]。因此,微生物发酵法生产琥珀酸成为了全球关注的热点。 酿酒酵母(Saccharomyces cerevisiae)具有食品安全[一般公认安全(generally recognized as safe,GRAS)]、易培养、发酵特性优良等优点[10-11],是生产琥珀酸的潜在菌株。 目前通过微生物发酵法提高微生物琥珀酸产量的策略主要为基因工程改造。 但是,在酱油生产领域(尤其是有机酱油),基因工程方法的应用受限。 因此,通过非基因工程手段提升微生物琥珀酸含量是增强产品风味、契合消费者对纯净标签期望的有效途径。 近年来研究者已经搭建了多种非基因工程手段来改善微生物性能。 其中,常压室温等离子体(atmospheric and room temperature plasma,ARTP)诱变技术是一种利用常压室温下的等离子体产生高能粒子、活性自由基等作用于生物细胞的DNA,诱导其发生基因突变,进而获得性状改良突变体的高效育种技术[12]。 基因组复制工程辅助连续进化技术(genome replication engineering assisted continuous evolution,GREACE)是另外一种用于微生物菌株改良的高效进化工程方法[13],其原理是通过引入经基因改造的DNA 聚合酶校对元件提高微生物体内突变率,在胁迫条件下实现“边突变边筛选”,将选择压力与细胞突变相结合的方法来筛选目的菌株,这种新模式大大缩短了育种周期,从而快速获得具有目标优良性状的菌株[14-15]。 以上2 种技术在工业酶制剂、生物基化学品合成和医药微生物育种领域微生物改造方面已经取得了较好的结果[14,16-17]。 因此,将ARTP 诱变和GREACE 技术进行结合使用,可以充分发挥物理诱变的广泛性和基因连续进化的高效性,从而更有效地获得具有优异性能的微生物菌株。
酿酒酵母为GRAS 菌株,其无需经过复杂的基因工程安全评估与审批流程,发酵产物在食品、医药等领域的应用具备天然合规性[18],因此在非基因工程手段制备琥珀酸中展现出突出的固有优势。 此外,酿酒酵母天然具备耐高糖、耐低pH、耐高渗透压的生理特征,可在粗放的发酵条件下维持稳定生长与代谢[11]。 团队前期研究已经搭建了基于突变因子POL3/01/L612M 的适用于酿酒酵母菌株突变的GREACE 体系,已在低乙醛酵母筛选等方面成功应用[13]。
论文首先测定了不同酱油样品的理化指标、代谢物组成及感官特性并分析了琥珀酸与酱油厚味之间的关联性; 在此基础上, 通过 ARTP 诱变以及GREACE 技术获得了1 株产琥珀酸能力显著提升且遗传稳定的酿酒酵母进化菌株;最后,优化了该进化菌株的发酵培养基和发酵条件。
1 材料与方法
1.1 材料与试剂
1.1.1 微生物菌株、质粒及培养基
啤酒酵母(G03-H8、G03-24、M14、C05、US05)、葡萄酒酵母(D-254、LA-FR、F1、F2、F3、G1、G3、G5),实验室保藏;面包酵母(An、Ag、XMY),市售;质粒YEP352-PAK-POL3/01/L612M,实验室构建。
种子培养基(g/L):酵母粉10、蛋白胨20、葡萄糖20,用于酵母菌株的培养;固体筛选培养基(g/L):葡萄糖20、酵母粉10、蛋白胨20、NaHCO3 0.4、溴甲酚紫0.05、琼脂粉20,用于ARTP 诱变菌株的筛选;高盐筛选培养基(g/L):葡萄糖20、酵母粉10、蛋白胨20、NaCl 94、G418 0.2,用于GREACE 技术所产生突变菌株的筛选;发酵培养基(g/L):葡萄糖80、玉米浆7、酵母粉13、MgSO4·7H2O 1.5、ZnSO4·7H2O 0.5、K2HPO4·3H2O 3,用于酵母菌株的发酵实验。
1.1.2 材料与化学试剂
市售酱油产品购于当地超市或线上渠道。 食品级琥珀酸,山东齐鲁科技有限公司;PCR 酶,大连宝生物工程有限公司(Takara)或上海赛默飞世尔科技公司;有机酸标准品,阿拉丁试剂(上海)有限公司;其他试剂均为分析纯,上海国药集团。
1.2 仪器与设备
HVE-50 全自动高压蒸汽灭菌锅,日本HIRAYAMA株式会社;ARTP 常压室温等离子体诱变仪,北京思清源生物科技有限公司;BSP-250 恒温生化培养箱,上海博迅实业有限公司;安捷伦1260 高效液相色谱仪,安捷伦科技公司;5804R 高速冷冻离心机,德国Eppendorf 公司;UV-2000 紫外可见分光光度计,UNICO(上海)仪器有限公司。
1.3 实验方法
1.3.1 酱油理化指标的测定
酱油氨基酸态氨和总酸含量测定采用酸度计法,参照GB 5009. 235—2016《食品安全国家标准食品中氨基酸态氮的测定》和GB 12456—2021《食品安全国家标准食品中总酸的测定(含第1 号修改单)》;酱油中还原糖含量测定采用直接滴定法,参照GB 5009.7—2016《食品安全国家标准食品中还原糖的测定》。
1.3.2 酱油的感官品评
从实验室招募了10 名身体健康、富有感官评价经验的感官评价小组成员。 将样品置于不透明的一次性纸杯中,每杯含有10 mL 不同品牌酱油样品,每个样本用一个3 位随机数编码。 使用1 ~10 的等级对样品的强度进行评分。
1.3.3 琥珀酸在酱油中的添加实验
将食品级琥珀酸以不同比例添加到酱油中,使酱油中的琥珀酸终质量浓度分别达到3、6、9、12、15 g/L,并通过1.3.2 节的方法对添加琥珀酸前后溶液进行滋味感官品评,并记录得分。
1.3.4 有机酸测定方法
精确量取5 mL 酱油样品,加水溶解后置于50 mL容量瓶中,加入2 mL 硫酸锌溶液(300 g/L)和2 mL亚铁氰化钾溶液(150 g/L),定容至50 mL 离心。 上清液使用0.22 μm 有机膜进行过滤,采用安捷伦高效液相色谱进行分析。 色谱柱为Aminex HPX-87H(300 mm ×7.8 mm),流动相为5 mmol/L H2SO4,流速为0.6 mL/min,柱温60 ℃,进样量10 μL,RID 35 ℃[19]。
1.3.5 酵母生长曲线的测定
将菌株在液体YPD 培养基中活化,以1%(体积分数)接种量接种于100 mL 种子培养基中,在28 ℃、180 r/min 条件下进行培养,每隔4 h 取样测定菌株干重,吸取10 mL 酵母培养液于离心管中,8 000 r/min 离心2 min,收集酵母菌体。 用去离子水洗涤菌体2 次,放入105 ℃烘箱中烘干至恒重。 称量质量并记录,以时间为横轴,酵母细胞干重(dry cell weight,DCW)为纵轴绘制生长曲线。
1.3.6 琥珀酸含量测定
将菌株在液体YPD 培养基中活化,以1% (体积分数)接种量接种于100 mL 种子培养基中,在28 ℃、180 r/min 条件下培养24 h 后,将发酵液于8 000 r/min 离心5 min,收集上清液使用0.22 μm 有机膜进行过滤,采用安捷伦高效液相色谱进行分析。色谱柱为Aminex HPX-87H (300 mm ×7.8 mm),流动相为5 mmol/L H2 SO4,流速为0. 6 mL/min,柱温60 ℃,进样量10 μL,RID 35 ℃[18]。
1.3.7 ARTP 诱变
1.3.7.1 ARTP 诱变条件的确定
取培养至对数期的菌液0. 1 mL,向其中加入0.9 mL 无菌水得到10-1菌液。 取10 μL 菌悬液均匀涂布于载片上,以100 W 功率将等离子炬嘴出口与样品板之间距离调整至2 mm,分别照射0、115、120、125、130、135 s。 诱变后将载片上的菌体用无菌生理盐水振荡洗脱,进行适当稀释后取0.1 mL 涂布在初筛培养基上,于28 ℃静置培养2 d,通过公式(1)计算致死率:
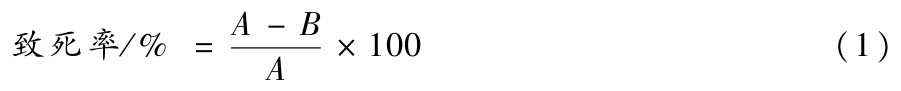
式中:A,未经诱变处理的总菌落数,个;B,诱变处理后存活的菌落数,个。
1.3.7.2 酿酒酵母的ARTP 诱变
将培养至对数生长期的酿酒酵母菌株放置于载片上,以确定的较优ARTP 诱变条件下进行诱变,诱变后用无菌生理盐水振荡洗脱,稀释10 倍后取0.1 mL 涂布在初筛溴甲酚紫培养基上,于28 ℃静置培养2 d,量取菌落变色圈直径(H)与菌落直径(C),计算其比值(H/C),并与出发菌株比较,选择H/C 比值大于出发菌株的单菌落[20]。 将得到的诱变菌株进行编号,并接种至YPD 培养基于28 ℃,180 r/min 培养24 h 进行培养并保菌。 在此基础上,通过1.3.6 节所述高效液相色谱法测定筛选获得菌株发酵所得液体的琥珀酸含量,挑选琥珀酸含量高对应的诱变菌株。
1.3.8 GREACE 技术在提升酵母产琥珀酸中的应用
1.3.8.1 GREACE 质粒的转化
将含质粒YEP352-PAK-POL3-01/L612M 的大肠杆菌(Escherichia coli)BL21 于37 ℃、180 r/min 培养12 h 后按照质粒提取试剂盒(OMEGA)提取质粒,使用电穿孔法[21]将质粒YEP352-PAK-POL3-01/L612M转化到通过ARTP 诱变得到的诱变菌株中,电转条件:2 mm 电转杯、3 kV、200 Ω、5 μF。 电转后,于30 ℃、200 r/min 下复苏2 h 后,取100 μL 涂布在含有G418 的YPD 固体平板上,28 ℃培养2 d。 能够生长的转化子被认为转化初步成功。 在此基础上挑取单菌落,并进行菌落PCR。 使用引物 KanMX-F:CTATCTAGACAGCGACATGGAGG和KanMX-R:ACGCGTCGACTCGACACTGGATGG 扩增 KanMX 基因对其进一步验证。 菌落PCR 体系(20 μL):2 ×ExTaq DNA 聚合酶10 μL,无菌水7 μL,上下游引物各1 μL,模板DNA 1 μL。 PCR 反应条件如下:预变形95 ℃5 min,95 ℃30 s,退火温度67 ℃30 s,72 ℃2 min,35 个循环,72 ℃10 min 终延伸,获得PCR 产物经琼脂糖凝胶电泳验证后送上海生工进行测序。
1.3.8.2 酵母适应性进化及突变菌株筛选
前期研究发现,酵母菌株耐受渗透压的能力可能与其琥珀酸积累能力相关,因此选择以NaCl 浓度为筛选压力[19]。 将构建得到的含增变因子的酵母菌株接种至含1 mol/L NaCl 的10 mL YPD 培养基中并于28 ℃培养48 h,然后以1% 接种量重复接种到含1 mol/L NaCl 新鲜YPD 培养基中培养2 d。 培养结束后再次转移至当前浓度的YPD 培养基中培养,当酵母菌株OD600nm 值趋于稳定且比出发菌株高时将其转接至含1. 2 mol/L NaCl 的YPD 培养基中重复上述操作,后续进一步将YPD 培养基所含盐度逐步提升至1.4、1. 6、1. 8 mol/L。 在每个盐度梯度培养时均设置3 个平行。 在每次转接结束时,收取每个浓度的进化细胞群体,测定其生物量及其对应琥珀酸含量。
1.3.8.3 质粒移除
将得到进化细胞群体接种在不含G418 抗性的YPD 液体培养基中连续传代移除增变因子,48 h 后进行一次转接,转接3 次后取100 μL 细胞液稀释涂布至含G418 抗性和不含G418 抗性的YPD 固体平板;若在含G418 抗性的YPD 固体平板中无法生长,则认为质粒可能已经移出,同时停止传代。 在此基础上,并通过PCR 扩增KanMX 基因,扩增方法参考1.3.8.1 节。 若未检测到KanMX 基因则表明对应质粒已经成功移除。 将移除质粒的进化酵母群体涂布在新鲜YPD 固体平板,于28 ℃培养48 h 后挑取获得的单菌落于新鲜YPD 液体培养基中,在28 ℃培养48 h 后参考1.3.6 节的方法测定发酵液中的琥珀酸含量。
1.3.9 进化酵母菌株的遗传稳定性分析
将筛选获得的具有较高琥珀酸产量的进化酵母菌株在新鲜YPD 液体培养基中进行连续传代5 次,在每次传代后均进行摇瓶发酵并测定发酵液中的琥珀酸含量。 上述实验设置3 个平行。
1.3.10 发酵条件优化
以发酵培养基为基础,以培养结束后的酵母DCW 和琥珀酸含量为指标,考察不同碳源(葡萄糖、蔗糖、果糖、麦芽糖、甘油、木糖)及较优碳源质量浓度0、10、20、40、60、80、100 g/L)、氮源种类(酵母浸粉、牛肉浸粉、蛋白胨、大豆蛋白胨)及氮源质量浓度(0、10、20、30、40、50 g/L)、磷源种类(KH2 PO4、K2HPO4·3H2 O、NaH2 PO4、Na2 HPO4·12H2 O)及质量浓度(0、0.5、1、2、3、4 g/L)、无机盐种类(MgSO4·7H2O、ZnSO4·7H2O)及其不同质量浓度(0、0.5、1、1.5、2、2.5 g/L)对酵母菌株产琥珀酸含量的影响,以确定最佳培养基组分和质量浓度。 在此基础上,基于上述优化后的培养基配方,进一步考察不同发酵温度(24、26、28、30、32 ℃)、初始pH 值(4. 5、5. 0、5. 5、6. 0、6.5、7.0)和接种量(1%、3%、6%、9%、12%,体积分数)对酵母菌株生长量和琥珀酸含量的影响,以确定较优发酵培养条件。
1.3.11 酵母菌株的5 L 罐发酵
1.3.11.1 分批发酵
菌株分批发酵将菌株在28 ℃、180 r/min 活化好的种子液以10%(体积分数)接种至装有3 L 优化培养基的5 L 发酵罐中,将温度设置为26 ℃,初始转速为180 r/min,当溶解氧(dissolved oxygen,DO)降至30%以下时增加搅拌转速,根据DO 的变化调整转速。 每4 h 取样一次,测定残糖含量、DCW 和琥珀酸产量情况,直到DO 大幅增加时停止发酵。 残糖测定:取发酵液5 000 × g 离心5 min,将上清液用生物传感分析仪(bio-sensor analyzer,SBA)溶液稀释100倍取25 μL 样品打入SBA 内记录数据。
1.3.11.2 补料分批发酵
通过改变搅拌速率和通气量,使发酵罐中DO 水平保持在20% ~30%。 为了保证发酵过程中碳源的供应,12 h 后流加400 g/L 葡萄糖溶液,恒速补料维持罐内糖质量浓度为2 g/L,每6 h 取样一次,测定糖含量、DCW 和琥珀酸产量情况,直到DO 大幅增加时停止发酵。
1.4 数据处理
数据处理所有实验平行重复3 次,每组数据取平均值。 用Origin 2024 软件绘图,使用SPSS 软件对数据进行显著性分析。
2 结果与分析
2.1 琥珀酸对酱油厚味的影响
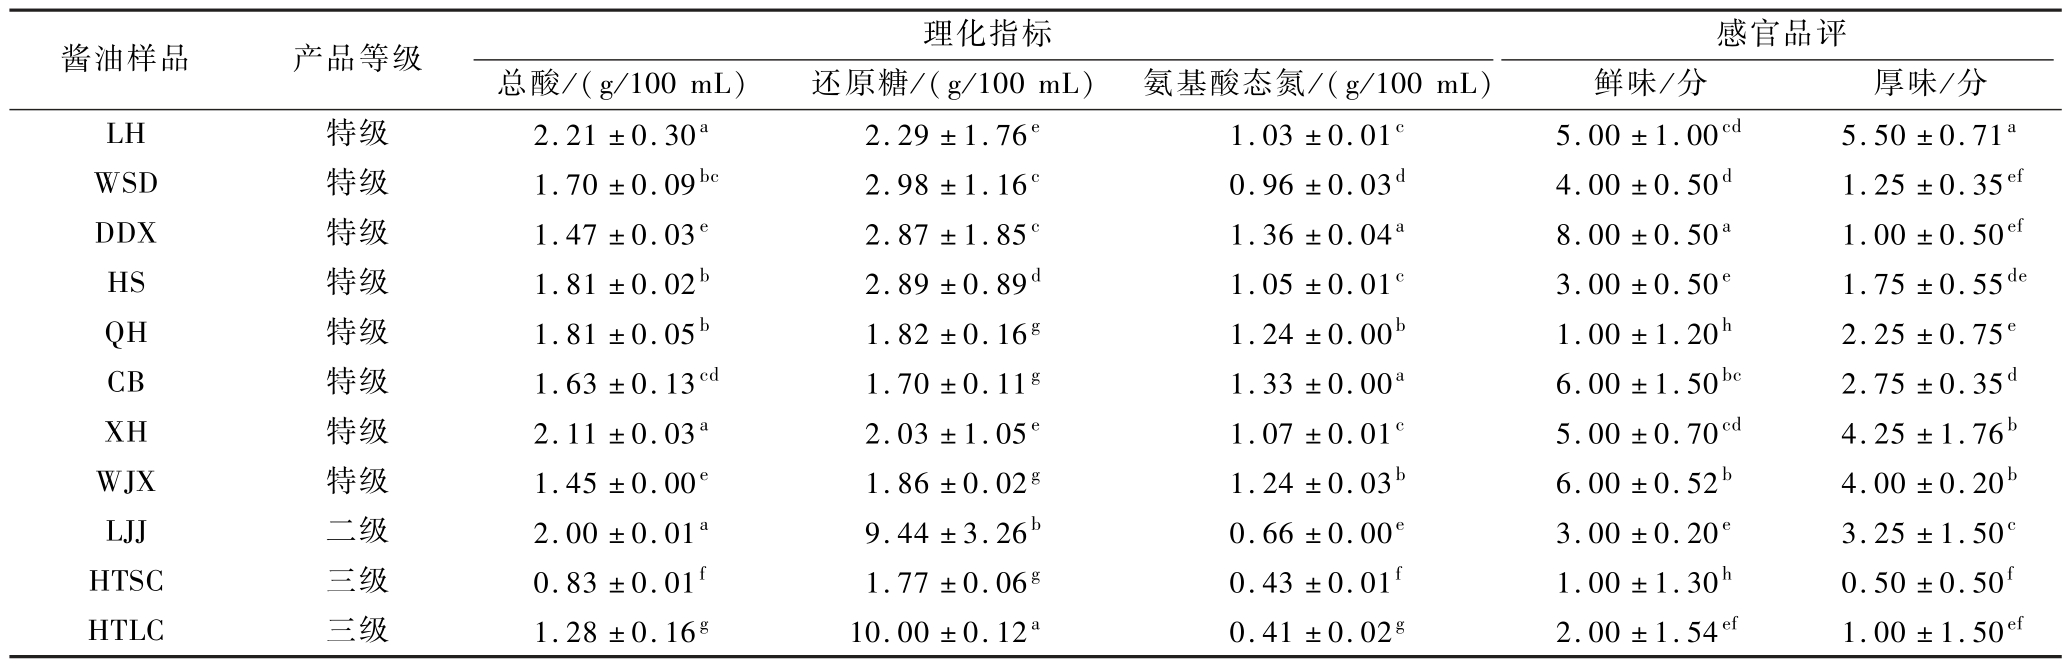
测定了11 种不同市售酱油的总酸、还原糖及氨基酸态氮含量,同时通过感官品评评价了其鲜味与厚味。 如表1 所示,11 种酱油样品的还原糖含量为1.7 ~10 g/100 mL,氨基酸态氮含量为0. 41 ~1.36 g/100 mL,总酸含量为0. 83 ~2. 21 g/100 mL;11 种酱油样品的厚味和鲜味感官评分差异较大。 其中,CB 和WJX 样品的鲜味评分较高,而LH 和XH 样品的厚味评价相对较高。
表1 不同品牌酱油的理化指标测定及感官品评结果
Table 1 Physicochemical parameters and sensory evaluation results of different soy sauce samples
酱油样品产品等级感官品评总酸/(g/100 mL)还原糖/(g/100 mL)氨基酸态氮/(g/100 mL)鲜味/分厚味/分理化指标LH特级2.21 ±0.30a2.29 ±1.76e1.03 ±0.01c5.00 ±1.00cd5.50 ±0.71a WSD特级1.70 ±0.09bc2.98 ±1.16c0.96 ±0.03d4.00 ±0.50d1.25 ±0.35ef DDX特级1.47 ±0.03e2.87 ±1.85c1.36 ±0.04a8.00 ±0.50a1.00 ±0.50ef HS特级1.81 ±0.02b2.89 ±0.89d1.05 ±0.01c3.00 ±0.50e1.75 ±0.55de QH特级1.81 ±0.05b1.82 ±0.16g1.24 ±0.00b1.00 ±1.20h2.25 ±0.75e CB特级1.63 ±0.13cd1.70 ±0.11g1.33 ±0.00a6.00 ±1.50bc2.75 ±0.35d XH特级2.11 ±0.03a2.03 ±1.05e1.07 ±0.01c5.00 ±0.70cd4.25 ±1.76b WJX特级1.45 ±0.00e1.86 ±0.02g1.24 ±0.03b6.00 ±0.52b4.00 ±0.20b LJJ二级2.00 ±0.01a9.44 ±3.26b0.66 ±0.00e3.00 ±0.20e3.25 ±1.50c HTSC三级0.83 ±0.01f1.77 ±0.06g0.43 ±0.01f1.00 ±1.30h0.50 ±0.50f HTLC三级1.28 ±0.16g10.00 ±0.12a0.41 ±0.02g2.00 ±1.54ef1.00 ±1.50ef
注:不同小写字母表示差异显著(P <0.05)(下同)。
进一步对酱油理化指标和感官品评结果进行了关联性分析。 如图1-a 所示,总酸与厚味间相关性系数为0.84,具有显著的正相关。 氨基酸态氮与酱油鲜味具有较高的相关性。 上述结果说明总酸含量相对较高的酱油其厚味感知越强,说明总酸可能对酱油厚味有重要影响。 酱油中的总酸主要来源于发酵产生的有机酸,这些酸味物质能增强口感的持续性[22-23]。 因此,进一步测定了酱油中的5 种主要有机酸含量。 如图1-b 所示,其中LH 与XH 酱油样品的乳酸与琥珀酸含量相对较高。 WJX、LJJ 和QH 样品的琥珀酸含量也较高。 对5 种有机酸与酱油感官品评结果进行了相关性分析,发现琥珀酸与酱油厚味感官得分之间的相关系数值为0.96,具有显著正相关(图1-c);乳酸与厚味的相关系数较低,对厚味感知的贡献度较小;乙酸、柠檬酸与厚味呈负相关。 由此可见,琥珀酸在酱油的厚味感知中可能起关键作用。
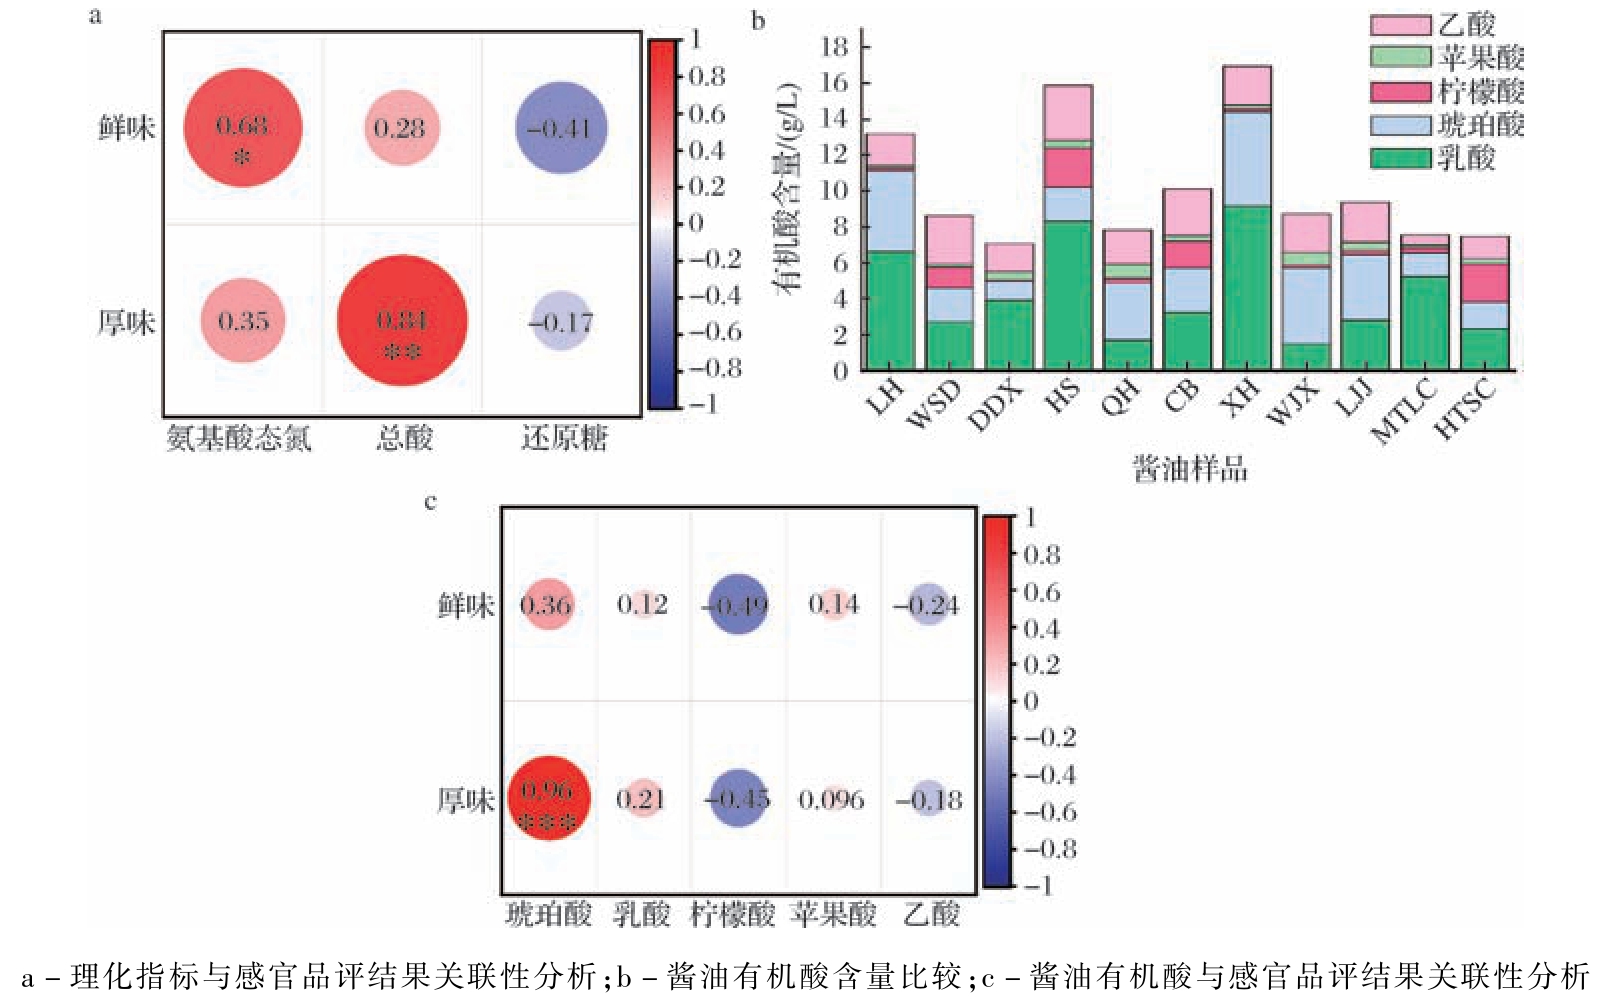
图1 酱油厚味影响因素分析
Fig.1 Analysis of factors affecting kokumi of soy sauce
注:*P≤0.05,**P≤0.01,***P≤0.001。
为了进一步验证琥珀酸在酱油厚味中的作用,将不同浓度的琥珀酸加入酱油中,并进行了感官评价。如图2 所示,在琥珀酸终质量浓度为6 ~9 g/L 时,酱油厚味的感官得分提升相对较快。 根据感官品评小组描述,在6 g/L 琥珀酸终质量浓度条件下开始能够感知到酱油较明显的厚味。 随着琥珀酸含量的提高,酱油的典型性得分略有降低。 由此可见,酱油中存在适量的琥珀酸有利于其厚味感知。
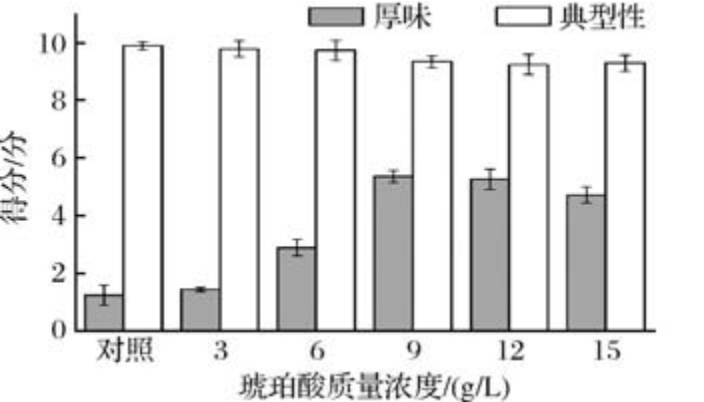
图2 不同琥珀酸质量浓度条件下酱油的厚味及典型性感官评分结果
Fig.2 Sensory evaluation results of kokumi and typicality of soy sauce with different succinic acid mass concentrations
2.2 产琥珀酸酵母菌株的选育
2.2.1 出发菌株的确定
考察了面包酵母、啤酒酵母和葡萄酒酵母的琥珀酸含量。 如图3 所示,LA-FR 菌株发酵所得产品中的琥珀酸产量为0.25 g/L,显著高于其他酵母(P <0.05)。因此,选取LA-FR 酵母菌株作为出发菌株。
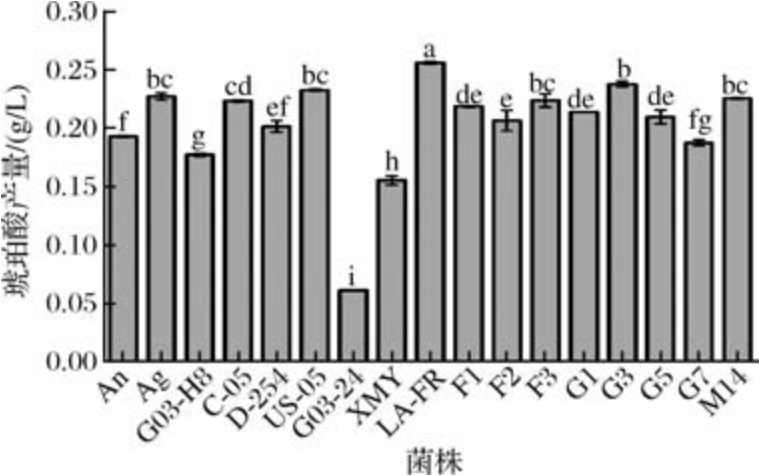
图3 酵母菌株琥珀酸产量比较
Fig.3 Comparison of succinic acid yield of different yeasts
注:不同小写字母表示差异显著(P <0.05)(下同)。
2.2.2 ARTP 诱变及筛选
测定了LA-FR 菌株的生长曲线,发现该菌株在培养4 ~16 h 时处于对数生长期[见电子版增强出版附图1-a(https:/ /doi. org/10.13995/j. cnki.11-1802/ts.045299,下同)]。 因此,选取培养12 h 的细胞作为处理对象。 测定了不同ARTP 处理时间下的菌株致死率,发现处理125 s 后菌株致死率为80% ~85%,其作为较优处理时间(附图1-b)。 在ARTP 诱变后,将诱变菌株涂布在筛选培养基,测定其与出发菌株的变色圈直径,并计算H/C 值。 如表2 所示,有49 株诱变菌株的H/C 值高于出发菌株。
表2 ARTP 诱变前后菌株变色圈直径分析单位:mm
Table 2 Analysis of color zone diameters of mutant strains after ARTP mutagenesis

菌株编号H 值C 值H/C菌株编号H 值C 值H/C菌株编号H 值C 值H/C LA-FR7.006.101.13 LA-FR-518.006.301.27 LA-FR-988.005.001.33 LA-FR-18.507.001.21LA-FR-558.107.001.16LA-FR-998.207.001.17 LA-FR-48.006.001.31LA-FR-647.506.501.15LA-FR-1007.005.901.19 LA-FR-57.906.801.16LA-FR-668.006.801.23LA-FR-1058.006.901.16 LA-FR-97.006.101.15LA-FR-687.806.801.15LA-FR-1068.006.501.23 LA-FR-128.306.901.20LA-FR-698.506.901.23LA-FR-1078.507.001.21 LA-FR-157.506.501.15LA-FR-728.006.501.23LA-FR-1118.306.901.20 LA-FR-198.006.101.31LA-FR-738.306.201.34LA-FR-1158.207.001.17 LA-FR-218.306.101.36LA-FR-748.106.801.19LA-FR-1167.006.001.17 LA-FR-257.506.201.21LA-FR-757.806.501.20LA-FR-1208.007.001.14 LA-FR-367.907.001.13LA-FR-768.006.801.18LA-FR-1258.506.501.31 LA-FR-377.506.501.15LA-FR-848.006.701.19LA-FR-1287.906.901.14 LA-FR-407.606.501.17LA-FR-878.507.001.21LA-FR-1328.006.901.16 LA-FR-428.007.001.14LA-FR-918.506.101.39LA-FR-1347.906.901.18 LA-FR-448.007.001.14LA-FR-948.606.101.41LA-FR-1417.005.901.19 LA-FR-477.806.901.30LA-FR-968.706.501.34LA-FR-1438.707.001.24 LA-FR-1457.606.501.16LA-FR-1467.906.701.18
注:H:变色圈直径;C:菌落直径。
将具有较大H/C 值的49 株诱变菌株与出发菌株接种在新鲜YPD 培养基中,并测定了发酵液中的琥珀酸产量。 如图4 所示,23 株诱变菌株的琥珀酸产量高于出发菌株。 其中,LA-FR-100 菌株的琥珀酸含量达到291.12 mg/L,和出发菌株LA-FR 相比提高了15.62%(P <0.05)。
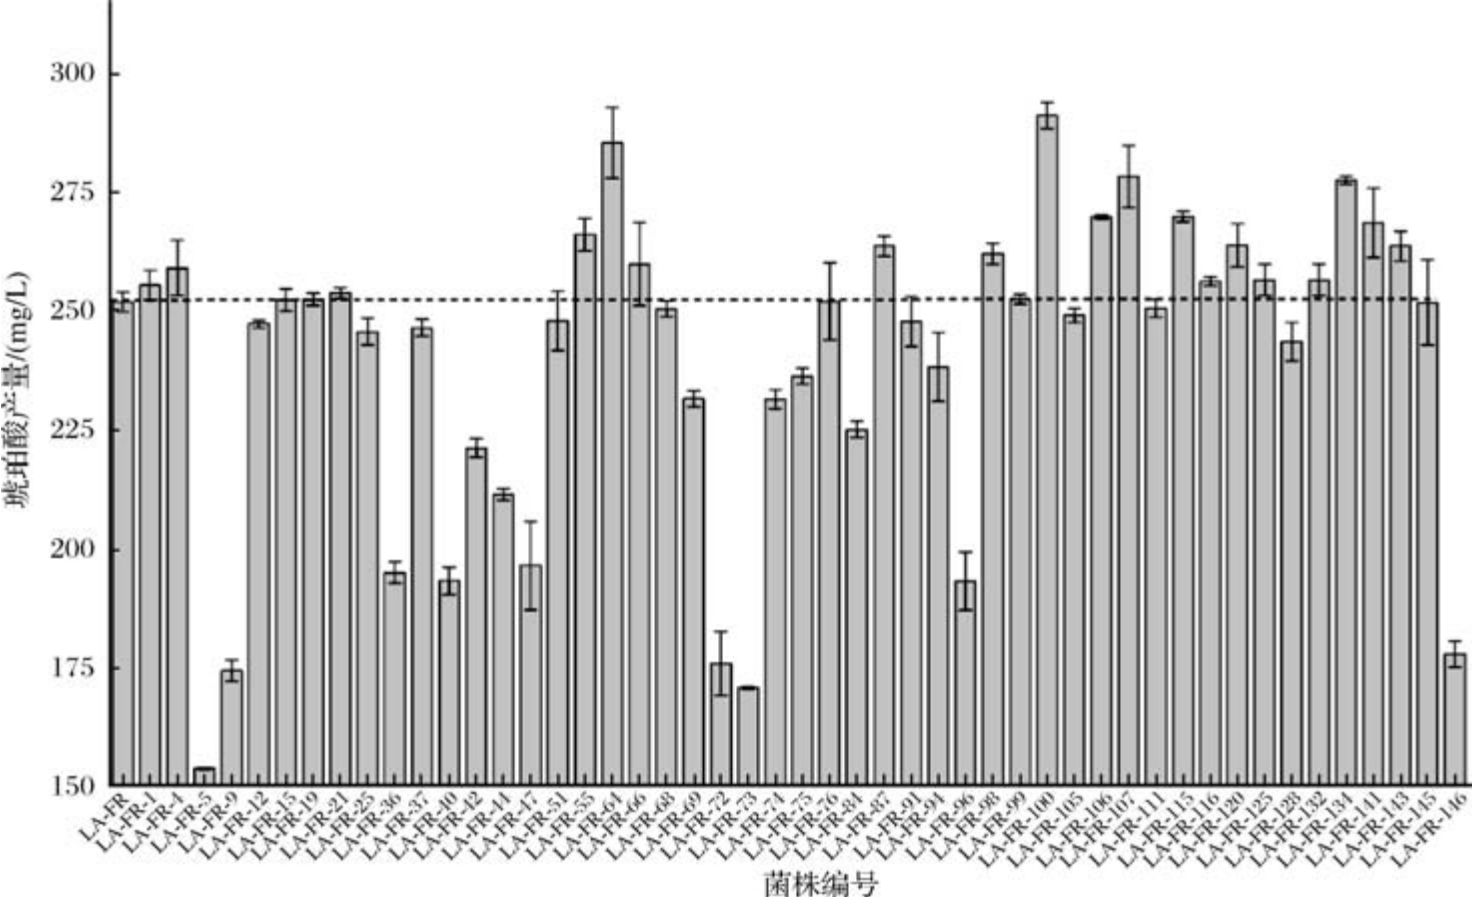
图4 亲本菌株和ARTP 诱变菌株的琥珀酸产量比较
Fig.4 Comparison of succinic acid concentrations produced by parental and mutant strains
2.2.3 增变因子辅助酵母育种
GREACE 技术是在大肠杆菌中引入错配倾向DNA 聚合酶(增变因子),使得细胞在复制过程中发生错配,从而使得子代细胞产生突变,伴随压力筛选从而提高菌株性能。 该技术的流程图如图5-a所示[14]。

图5 GREACE 技术应用于酵母菌株琥珀酸产量结果
Fig.5 Results of GREACE technology application on succinic acid yield in yeast strains
2.2.3.1 增变因子在酵母中的引入
将YEP352-PAK-POL3-01/L612M 质粒通过电转化法转化到LA-FR-100 菌株,获得转化子后通过扩增KanMX 基因验证其转化效果。 如附图2-a 所示,增变因子已成功导入酵母。
2.2.3.2 实验室适应性进化及筛选
根据前期文献报道[19],通过提升培养基中的NaCl 含量以期提升酵母菌株的琥珀酸产量。 由于突变菌株的随机性,采用4 条独立平行路线进行进化,记为进化1、2、3、4,以未引入增变因子的出发菌为对照。如图5-b 所示,当盐浓度达到1.2、1.4、1.6 mol/L 时,进化1 体系中获得的进化菌株的OD600nm 值显著高于出发菌株,表明这个突变体系在高盐条件下的生长表现更好,可能具有一定的耐盐性优势。 虽然进化3 体系在1.4 mol/L 条件下的生长情况优于对照,但其在更高压力下的生长优势逐渐丧失。 当盐浓度达到1.8 mol/L 时,进化1 菌株OD600nm 值均高于进化2、进化3 和进化4 菌株。 在此基础上,进一步测定了进化1体系菌株在不同盐度驯化后的琥珀酸含量。 如图5-c所示,进化1 体系菌株的琥珀酸产量随着NaCl浓度的提高而提高。 在1.6 mol/L NaCl 条件下,菌株的琥珀酸产量为589. 14 mg/L, 琥珀酸产率为11.32%。 当盐度进一步提升至1. 8 mol/L 时,其琥珀酸产量开始下降。 最后将在1.6 mol/L 盐度下得到的进化1 体系在无KanMX 抗性的培养基里连续传代多次,随机挑取20 株菌并扩增了其KanMX 基因。如附图2-b 所示,PCR 并没有获得对应条带,结合其在抗性平板已无法生长,说明增变因子已成功移除。对20 株菌的琥珀酸产量进行发酵验证,发现有14 株进化菌株的琥珀酸产量高于对照菌株(图5-d)。 其中,15 号进化菌株(LA-FR-100-15)的琥珀酸产量达到620.12 mg/L,和出发菌株相比提高了106%。
2.2.3.3 进化菌株LA-FR-100-15 的遗传稳定性测试
微生物菌株的遗传稳定性是其能稳定遗传的基础,因此通过连续传代培养测定进化菌株LA-FR-100-15 的遗传稳定性。 如图5-e 和图5-f 所示,传代5 次后该菌株的琥珀酸产量稳定在600 ~620 mg/L,生物量稳定在3.8 ~4.0 g/L,说明该进化菌株具有较好的遗传稳定性。
2.3 进化菌株产琥珀酸的发酵条件优化
通过单因素试验优化了发酵培养基组成。 从图6-a 可以看出,葡萄糖是较优的碳源,其对应琥珀酸含量达到661 mg/L;进一步考察了其含量对琥珀酸产量的影响,发现当葡萄糖添加量为8% 时,琥珀酸含量提升至857. 9 mg/L,生物量达到8. 93 g/L。较优氮源为酵母浸粉,当添加20 g/L 该氮源时进化菌株的琥珀酸产量最高为950 mg/L,生物量为10.1 g/L;由于酵母浸粉价格较高,选择其他氮源与酵母粉作为混合氮源。 结果发现以酵母浸粉和玉米浆混合作有机氮源时,其效果优于单一酵母浸粉。 当酵母浸粉与玉米浆质量浓度配比为1∶0.5 时,进化菌株的琥珀酸产量最高达到1.08 g/L。 较优的磷源为K2HPO4·3H2O。 在培养基中添加3 g/L K2HPO4·3H2O 时,进化菌株产琥珀酸的含量进一步提高至1.365 g/L。 进一步优化了培养基中的无机盐组成,结果发现在培养基中添加1.5 g/L MgSO4·7H2O 和0.5 g/L ZnSO4·7H2O 的效果较好,进化菌株产琥珀酸含量达到1. 412 g/L。由此可见,进化菌株LA-FR-100-15 的较优发酵培养基组成为葡萄糖80 g/L、酵母浸粉13 g/L、玉米浆7 g/L、K2HPO4·3H2O 3 g/L、MgSO4·7H2 O 1.5 g/L、ZnSO4·7H2O 0.5 g/L。 进一步优化了进化菌株产琥珀酸的发酵条件。

图6 不同培养基组分和发酵条件对酵母菌株生物量以及琥珀酸产量的影响
Fig.6 Effects of media composition and fermentation condition on biomass and succinic acid yield of evolved strain
从图6-b 可以看出,较优的培养温度为26 ℃;在该条件下,菌株的琥珀酸产量为1.43 g/L,生物量为10.05 g/L。 较优的发酵初始pH 值为pH 6.5,酵母接种量为9%,进化菌株的琥珀酸产量达到1.54 g/L,生物量为9. 49 g/L。 由此可见,进化菌株LA-FR-100-15 的较优发酵条件为26 ℃、初始pH 6.5、接种量9%。
2.4 进化菌株5 L 罐发酵实验
2.4.1 分批发酵
摇瓶发酵体系存在局限性,既不能满足工业化生产的放大需求,也无法准确表征规模化发酵的实际情况,故需进行扩大发酵培养实验。 因此,进一步在5 L发酵罐中系统研究LA-FR-100-15 菌株的生长特性及产物合成动态趋势。 如图7 所示,该菌株在12 ~16 h内生长迅速,在4 h 内还原糖消耗11.25 g/(L·h)。由图7-b 可知,在培养第16 h 时发酵液残糖含量几乎降为0。 最终,该菌株在5 L 发酵罐中的生物量与琥珀酸产量较摇瓶培养条件均有一定提升。 发酵结束后,DCW 为14.55 g/L,而琥珀酸产量为3.16 g/L。考虑到还原糖在培养16 h 即接近耗尽,后期进一步采用补料发酵方式提升菌体量和琥珀酸产量。
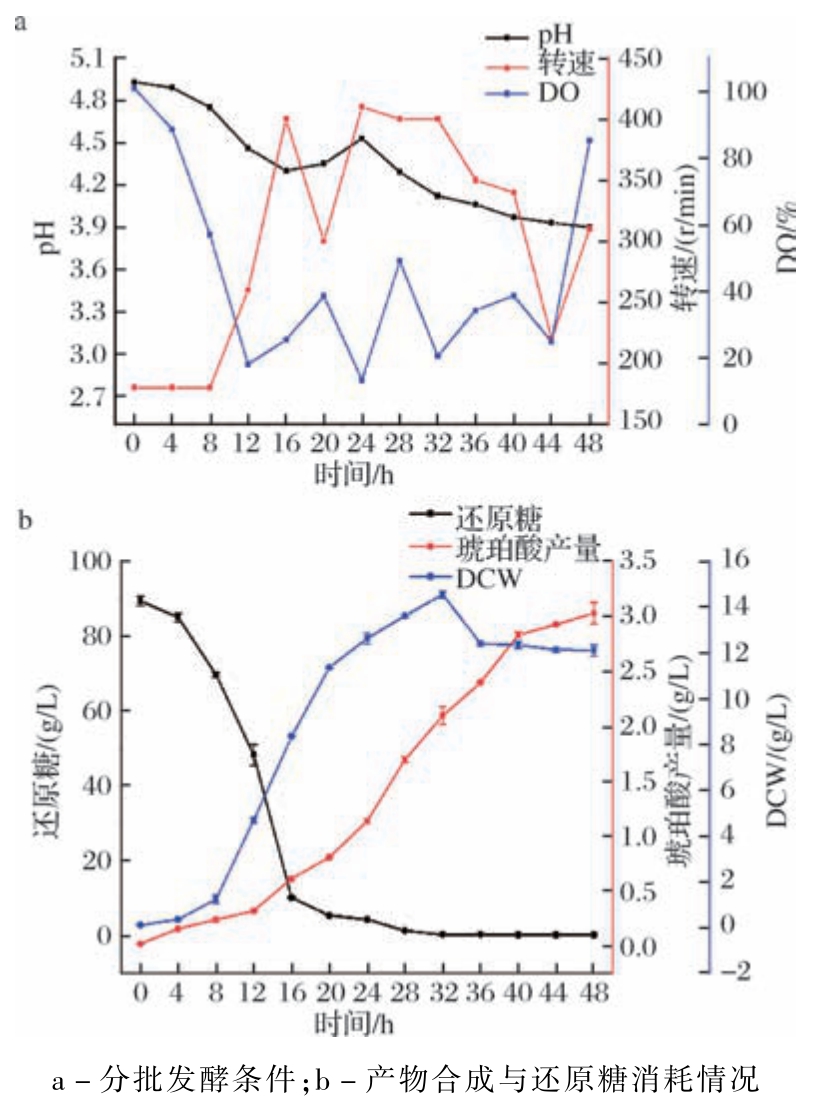
图7 分批发酵条件与产物合成与还原糖消耗情况
Fig.7 Conditions in batch fermentation and production synthesis and reducing sugar consumption
2.4.2 补料分批发酵
采用5 L 发酵罐补料分批发酵策略,对发酵过程中关键参数pH、搅拌转速、DO 及产物琥珀酸产量、DCW、还原糖消耗进行实时监测,以探究发酵过程的动态变化规律。 如图8-a 所示,发酵初期pH 下降后维持在4 左右,说明菌体代谢产生酸性物质,后续使pH 保持相对稳定;转速随发酵进程波动上升,结合DO 变化可知,转速提升是为了缓解溶氧不足,当DO下降时提高转速,通过调节搅拌强度强化氧传递;发酵前期还原糖快速消耗后期维持罐内糖质量浓度为2 g/L,以保证补料策略有效维持碳源供应,避免底物限制;DCW 随发酵进程持续上升,后期增速放缓,琥珀酸产量与DCW 变化趋势一致,后期持续积累,说明发酵过程中菌体生长与产物合成同步,补料分批策略有效提升了产物产量。 在发酵66 h 时,DW 达到57.8 g/L,而发酵液琥珀酸产量达到9.6 g/L。
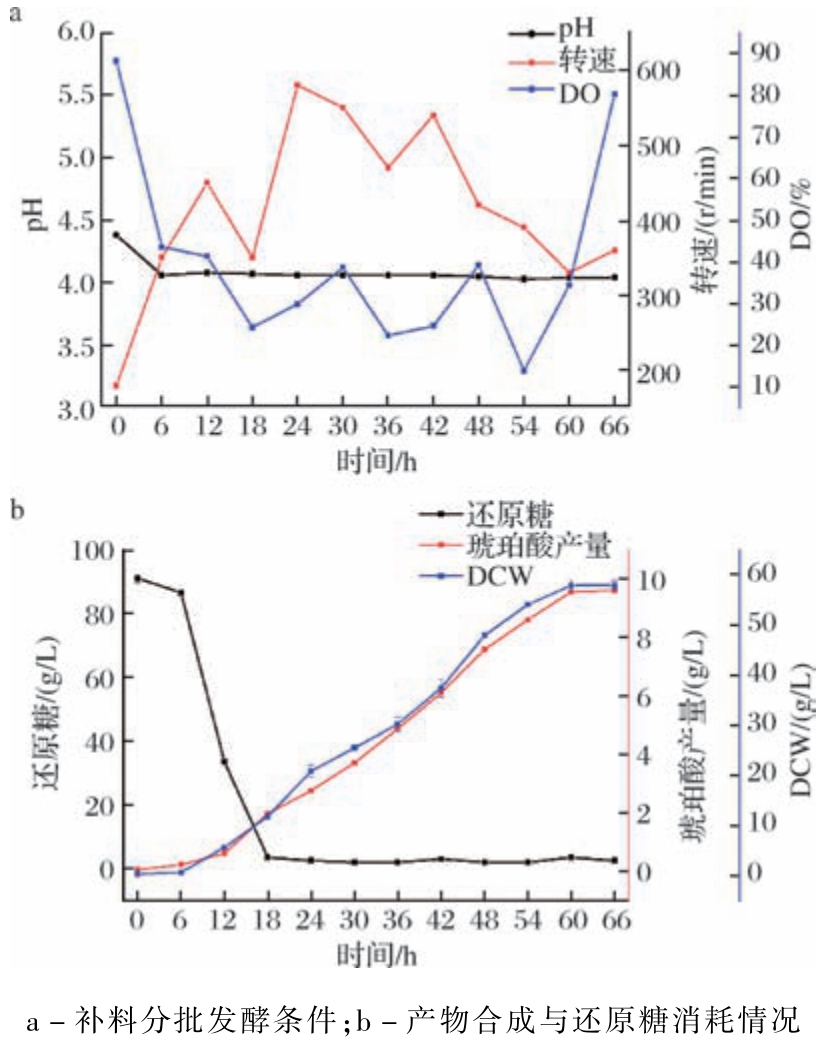
图8 补料分批发酵条件与产物合成与还原糖消耗情况
Fig.8 Conditions in fed batch fermentation production synthesis and reducing sugar consumption
3 结论
通过有机酸与酱油风味感官结果进行关联性分析,发现琥珀酸对酱油厚味有重要影响。 在此基础上,结合ARTP 和GREACE 技术对一株酿酒酵母进行了诱变及实验室进化实验,获得一株遗传稳定的进化菌株LA-FR-100-15,其琥珀酸产量为620.12 mg/L,和出发菌株相比提高了106%。 进一步优化了该菌株的发酵培养基组成及发酵条件,发现其较优培养基组成为葡萄糖80 g/L、酵母浸粉13 g/L、玉米浆7 g/L、K2 HPO4 ·3H2 O 3 g/L、MgSO4 ·7H2 O 1. 5 g/L、ZnSO4·7H2O 0.5 g/L,较优发酵条件为26 ℃、初始pH 6.5、接种量9%。 在此条件下,该菌株的琥珀酸产量达到1.54 g/L,与优化前相比提高148.7%。 在5 L 发酵罐中进行分批发酵与补料分批发酵,进化菌株的琥珀酸产量最终达到9.6 g/L。 为了进一步提升酵母菌株琥珀酸产量,未来将进一步设计更具指向性的进化压力进行菌株进化并开展5 L 发酵罐工艺优化。
[1] 张颖超. 酱油酿造功能微生物分离及强化发酵对酱油品质的影响[D].济南:齐鲁工业大学, 2023.Zhang Y C. Effects of microbial separation and intensive fermentation on soy sauce quality in soy sauce brewing function[D]. Jinan:Qilu University of Technology, 2023.
[2] Feng Y Z, Zeng J, Lei H J, et al. Effect of fermentation containers on the taste characteristics and microbiota succession of soy sauce[J]. Food Chemistry, 2024, 448:139066.
[3] 罗艺璇, 张菊华, 赖慧婷, 等. 酱油发酵过程中的微生物多样性及功能研究进展[J]. 食品工业科技, 2025, 46(18):458 -468.Luo Y X, Zhang J H, Lai H T, et al. Research progress on microbial diversity and function in soy sauce fermentation process[J]. Science and Technology of Food Industry, 2025, 46(18):458 -468.
[4] Lao H F, Chang J C, Zhuang H N, et al. Novel kokumi peptides from yeast extract and their taste mechanism via an in silico study[J]. Food & Function, 2024, 15(5):2459 -2473.
[5] 周婷. 酱油中香气-滋味交互作用对其风味影响的研究[D]. 广州:华南理工大学,2021.Zhou T. Effect of aroma-taste interaction on flavor of soy sauce[D].Guangzhou:South China University of Technology, 2021.
[6] 赵杨杨. 高盐稀态发酵法制备香菇酱油的研究[D].烟台:烟台大学, 2023.Zhao Y Y. Study on preparation technology of Lentinus edodes soy sauce by high-salt dilute fermentation[D].Yantai:Yantai University, 2023.
[7] 韩冉, 张玲玲, 黄文烨, 等. 假丝酵母的添加对高盐稀态酱油有机酸含量影响[J]. 中国调味品, 2021(5):5 -9.Han R, Zhang L L, Huang W Y, et al. Effect of the addition of Candida on the content of organic acids in high-salt liquid-state soy sauce[J]. China Condiment, 2021(5):5 -9.
[8] 陈涛. 酱油风味功能细菌的分离鉴定及其应用[D].广州:华南理工大学, 2021.Chen T. Isolation, identification and application of flavor functional bacteria in soy sauce[D]. Guangzhou:South China University of Technology, 2021.
[9] 邝生鲁, 贡长生. 琥珀酸的开发与应用前景[J]. 化工时刊,1991, 5(1):24 -26.Kuang S L, Gong C S. Development and application prospect of succinic acid[J]. Chemical Industry Times, 1991, 5(1):24 -26.
[10] Kim J Y, Lee J A, Lee S Y. Biobased production of succinic acid and its derivatives using metabolically engineered microorganisms[J]. Industrial Biotechnology, 2023, 19(3):125 -137.
[11] 顾子蕴, 唐永圣, 陈修来. 代谢工程改造酵母生产琥珀酸的研究进展[J]. 微生物学报, 2025, 65(2):467 -488.Gu Z Y, Tang Y S, Chen X L. Advances in metabolic engineering of yeast for succinic acid production[J]. Acta Microbiologica Sinica, 2025, 65(2):467 -488.
[12] 熊正军, 张慧莉. ARTP 诱变及高通量筛选硫酸新霉素高产菌[J]. 发酵科技通讯, 2026, 55(1):50 -55.Xiong Z J, Zhang H L. ARTP mutagenesis and high throughput screening of high-yield neomycin sulfate strains[J]. Bulletin of Fermentation Science and Technology, 2026, 55(1):50 -55.
[13] 许鑫. 基于增变因子选育低乙醛啤酒酵母及机制解析[D]. 无锡:江南大学, 2020.Xu X. Application of perturbation factor for breeding lager yeast with lower acetaldehyde production and related mechanisms analysis[D].Wuxi:Jiangnan University, 2020.
[14] Luan G D, Bao G H, Lin Z, et al. Comparative genome analysis of a thermotolerant Escherichia coli obtained by Genome Replication Engineering Assisted Continuous Evolution (GREACE) and its parent strain provides new understanding of microbial heat tolerance[J]. New Biotechnology, 2015, 32(6):732 -738.
[15] Luan G D, Cai Z, Li Y, et al. Genome replication engineering assisted continuous evolution (GREACE) to improve microbial tolerance for biofuels production[J]. Biotechnology for Biofuels,2013,6(1):137.
[16] Wang X W, Li Q G, Sun C M, et al. GREACE-assisted adaptive laboratory evolution in endpoint fermentation broth enhances lysine production by Escherichia coli[J]. Microbial Cell Factories,2019,18(1):106.
[17] 童凡, 黄家琪, 范坚强, 等. 常压室温等离子体诱变选育淀粉酶菌株及其酶学特性研究[J]. 食品工业科技, 2022, 43(20):137 -143.Tong F, Huang J Q, Fan J Q, et al. Selection of amylase producing strain by atmospheric and room temperature plasmas and its enzymological properties[J]. Science and Technology of Food Industry, 2022, 43(20):137 -143.
[18] Pereira K N, de Oliveira A C D, de Souza H F, et al. Application of Saccharomyces cerevisiae var. boulardii for biological detoxification of chemical contaminants in foods:a comprehensive review[J]. Foods, 2025, 14(24):4260.
[19] 唐文秀. 高产琥珀酸大肠杆菌的构建与发酵研究[D]. 无锡:江南大学, 2021.Tang W X. Construction and fermentation optimization of E.coli for high-producing succinate [D].Wuxi:Jiangnan University, 2021.
[20] 李瑞玲, 罗倚坪, 刘晓风, 等. 产琥珀酸菌LW-2 的筛选、鉴定及发酵条件优化[J]. 食品科学, 2020, 41(20):134 -140.Li R L, Luo Y P, Liu X F, et al. Isolation and identification of the succinic acid-producing bacterium Escherichia fergusonii LW-2 and optimization of fermentation conditions[J]. Food Science,2020, 41(20):134 -140.
[21] Yin W X, Hu H H. High-efficiency transformation of a centric diatom Chaetoceros muelleri by electroporation with a variety of selectable markers[J]. Algal Research, 2021, 55:102274.
[22] 张海珍, 蒋予箭, 陈敏. 多菌种制曲与发酵在酿造酱油中的应用现状[J]. 中国酿造, 2008, 27(9):1 -4.Zhang H Z, Jiang Y J, Chen M. Application of multi-strain inoculation in koji-making and fermentation in soy sauce production[J].China Brewing, 2008, 27(9):1 -4.
[23] 张丽杰, 张怀志, 徐岩. 枯草芽孢杆菌Nr.5 和底物添加促进酱油中吡嗪类物质合成[J]. 食品与发酵工业,2020,46(21):1-8.Zhang L J, Zhang H Z, Xu Y. Promotion of pyrazine-like components formation by addition of Bacillus subtilis Nr.5 and substrates during soy sauce fermentation[J]. Food and Fermentation Industries, 2020, 46(21):1 -8.