植物基原料发酵是食品工业中提升原料营养价值与功能特性的重要技术,麦胚作为面粉加工副产物,富含蛋白质、黄酮类化合物及氨基酸等营养成分,但其植酸、凝集素、蛋白酶抑制剂等抗营养因子的存在,以及易氧化酸败、溶解性与乳化性差、热加工稳定性不足等加工特性缺陷,构成了高值化利用的核心瓶颈,严重限制其规模化应用[1]。 乳酸菌发酵可有效降解麦胚抗营养因子,富集生物活性物质,已成为麦胚深加工的关键方向。 植物乳植杆菌作为公认的安全发酵菌株,针对麦胚高碳水、高纤维的基质特性,其强大的碳水化合物代谢能力可高效分解麦胚中的抗性多糖,同时通过合成有机酸、抗菌肽等生物活性产物,进一步改善麦胚加工稳定性,在谷物发酵食品开发中展现出独特且针对性的优势[2]。
多组学技术的发展为解析益生菌发酵机制提供了有力工具[3]。 基因组分析可揭示菌株功能基因潜力,代谢网络模型能明确基因与代谢通路的关联,代谢组检测则反映发酵产物的实际变化[4]。 近年研究多聚焦植物乳植杆菌单一功能优化或单一组学应用,如通过发酵提升麦胚抗氧化性、富集γ-氨基丁酸等,但多组学整合解析菌株基因潜力与麦胚基质适配机制的研究较少[5-6]。 然而,现有研究多单独聚焦代谢组学、16 s 等单一组学层面,对植物乳植杆菌在麦胚体系中基因组潜力-代谢网络调控-发酵产物输出的完整关联机制解析不足[7]。 不同菌株的代谢特性存在显著差异,特定菌株的功能基因与麦胚基质的适配性仍需系统验证。
本课题组前期已对植物乳植杆菌(Lactiplantibacillus plantarum)HUCF16 进行了初步的发酵能力分析,其表现出良好的麦胚发酵体系适应性,且体系的抗氧化效果、总黄酮、多酚和谷胱甘肽水平均显著提升,但其发酵机制尚未明确。 基于此,本研究整合全基因组分析、基因尺度代谢网络构建及麦胚发酵代谢组检测,系统解析该菌株的功能基因特征、核心代谢通路调控规律及其对麦胚代谢物组成的影响。 通过明确菌株碳水化合物代谢、氨基酸代谢相关基因与发酵产物的关联,揭示其适配麦胚基质的代谢策略,同时为益生菌-植物基原料精准发酵的多组学解析方法提供参考。
1 材料与方法
1.1 材料与试剂
L.plantarum HUCF16(实验室自主分离筛选,保藏于广东省微生物菌种保藏中心,保藏号:CDMCC No.64613);MRS 培养基和琼脂,北京陆桥技术股份有限公司;LC-MS 级甲醇、超纯水、LC-MS 级异丙醇、LC-MS 级乙腈,上海生工生物工程股份有限公司;盐酸、氯化钠,哈尔滨雨辰医科贸有限公司;LC-MS 级乙酸,上海埃彼化学试剂有限公司;所有试剂均用蒸馏水配制。
1.2 仪器与设备
DL-CJ-2 ND 超净工作台,北京东联哈尔仪器制造有限公司;TGL-16 离心机,上海医疗器械六厂;UV-1240 分光光度计,上海仪电分析仪器有限公司;冷冻干燥机,宁波新芝生物科技股份有限公司;UItiMate-3000 超高效液相色谱仪(ultra performance liquid chromatography,UPLC)、Q-Exactive plus 质谱仪,美国Thermo 公司。
1.3 实验方法
1.3.1 乳酸菌的培养
活化L. plantarum HUCF16 菌株,无菌条件下挑取单菌落接种至MRS 培养基(pH 6.2 ~6.4),37 ℃厌氧培养24 h 至对数生长期;期间通过平板计数法或浊度法(OD600) 监测菌液浓度,确保活菌数达到108 CFU/mL 以上,避免菌体量不足影响后续DNA 提取;培养结束后,将菌液置于4 ℃离心(6 000 r/min,5 min)收集菌体沉淀,用无菌PBS 缓冲液洗涤2 ~3次去除培养基残留,得到高纯度菌体沉淀( -60 ℃保存),用于后续基因组DNA 提取。
1.3.2 全基因组测序
提取高纯度基因组DNA(gDNA),经Nanodrop 检测A260/A280≈1.8、琼脂糖凝胶电泳验证无明显降解后,用超声波破碎仪将gDNA 打断为150 ~300 bp 的短片段,依次进行末端修复、3′-A 尾添加、含索引序列双链接头连接及低循环数(20 次)PCR 扩增,再经磁珠纯化富集目标片段完成文库构建,随后通过Agilent 2100 生物分析仪检测文库片段大小、Qubit 定量浓度(≥2 nmol/L)进行质控,最后将合格文库稀释至适配浓度,上机Illumina 二代测序平台完成测序,后续可结合生物信息学工具进行基因组组装与注释分析。
1.3.3 环境搭建
处理器为 AMD Ryzen 76800H with Radeon Graphics 3.20 GHz;机带RAM 16.0 GB;运行系统为Windows11 专业版。 运算平台为MATLAB(R2023b版本);搭载数学引擎Gurobi(12. 0. 1-win64 版本);求解器libSBML(5.19.0-win64 版本);数据分析使用COBRA Toolbox(3. 1 版本);可视化软件Cytoscape(3.10.0-windows_版本)。
1.3.4 粗模型的获取
本研究运用全基因组测序技术获取微生物原始遗传数据,数据的格式为FASTQ 格式,FASTQ 文件是无法直接使用的,所以需要借助生物信息学格式转换工具把测序数据统一处理成FASTA 格式序列文件,将整理好基因组数据上传到Model SEED在线分析平台,利用先进计算算法对目标基因组的蛋白质编码序列展开系统且全面的自动化功能注释。
1.3.5 模型完善
由Model SEED 平台生成的初始模型存在化合物属性信息缺失状况,致使无法直接开展网络优化分析,本研究运用MATLAB 2023b 平台联合COBRA代谢建模工具包来实施数据预处理:首先调用标准初始化程序载入代谢通量分析模块,配置Gurobi 数学优化器当作计算核心来提高运算稳定性。 加载原始模型文件、反应关系表以及化合物属性表构建基础数据集。 从Model SEED 官方数据库下载完整化合物属性文件,依靠标识符映射匹配,把缺失的分子量、质子化状态等参数补充到现有数据表中。
1.3.6 模型验证与功能验证
借助多层级验证体系来确认模型有生物学合理性以及计算可靠性,首先开展通量平衡分析(flux balance analysis,FBA),在模拟标准培养基条件时成功达成预设的生物量合成目标函数值,即1 000 mmol/g DW/h。针对全部反应开展全局通量可变性分析,依据质量守恒以及电荷守恒原理对所有反应做平衡性验证,以此保证代谢网络里的原子转移过程契合化学计量学规律,并且修正因离子态标记缺失致使的电荷失衡问题,基于此,整合基因本体注释信息来验证基因-蛋白质-反应,保证酶催化反应的遗传基础和已知生物学机制相符,最终验证模型。
1.3.7 乳酸菌发酵麦胚实验
取100 g 优质小麦胚芽,置于1 000 mL 无菌水中,按5%接种量接种乳酸菌液(未接种菌液的培养组为空白对照组,其他发酵条件保持一致),于37 ℃发酵时间48 h。 发酵结束后离心取上清液,冻干机中冻干密封,-20 ℃保存备用,以上操作均在无菌条件下进行。
1.3.8 代谢组分析
取发酵麦胚提取物冻干粉10 mg,于400 μL 甲醇(提前-20 ℃预冷)研磨并沉淀蛋白,15 000 r/min高速离心15 min,取上清液400 μL 于真空浓缩仪中进行浓缩,浓缩温度为25 ~30 ℃、梯度真空度(前10 min 80 ~90 kPa,后续95 ~100 kPa)条件下浓缩15 ~35 min 至无流动的黏稠液或干粉状,加入100 μL 甲醇∶水(4∶1,体积比)后涡旋30 s,15 000 r/min 高速离心15 min 取上清液于进样瓶中,采用UItiMate-3000 UPLC(2.1 mm ×100 mm T3 1. 8 μm 色谱柱)和QExactive plus 质谱仪分析样品的的非靶向代谢物。正离子流动相A 相为含0.1%甲酸的水溶液,B 相为含0.1%甲酸的乙腈;负离子:A 相为5 mmol/L 乙酸铵溶液,B 相为乙腈。 梯度洗脱:0 ~1.0 min,2% B;1.0 ~10 min,98% B;10 ~12 min,98% B;12 ~15 min,2% B。 柱温为35 ℃,流速为0.3 mL/min,进样量为1 μL。 样品盘温度4 ℃。 热电喷雾电离源(electrospray ionization,ESI)分别以正离子和负离子模式采集数据,全扫描范围分别为70 ~1 050 m/z。 离子源参数设置如下:电源电压1.50 kV,毛细管温度250 ℃,ESI -2 500 V,ESI + 3 500 V。 利用Compound Discovery 3. 1 软件的非靶向代谢工作流程处理质谱下机原始数据(. raw),包括数据提取、背景特征过滤、峰识别、去卷积、峰对齐和积分,与mz Cloud、HMDB、KEGG 和ChemSpider 数据库进行代谢物识别比对,数据处理滤除mz Cloud 评分低于80 分的物质及QC样品中出现<50%的代谢特征和QC 样品中出现>30% RSD 的代谢物[8]。
1.4 统计与分析
本研究实验设3 次生物学重复,基因组数据经生物信息学工具过滤、组装与注释,借助MATLAB 平台相关工具完成代谢网络构建与通量分析;代谢组数据用Compound Discovery 3.1 软件处理并结合多数据库鉴定代谢物,经PCA 及通路富集分析筛选核心通路;图表则通过GraphPad Prism 8. 0. 2、R 语言及Cytoscape 3.9.1 软件绘制。
2 结果与分析
2.1 植物乳植杆菌HUCF16 全基因组特征与功能基因解析
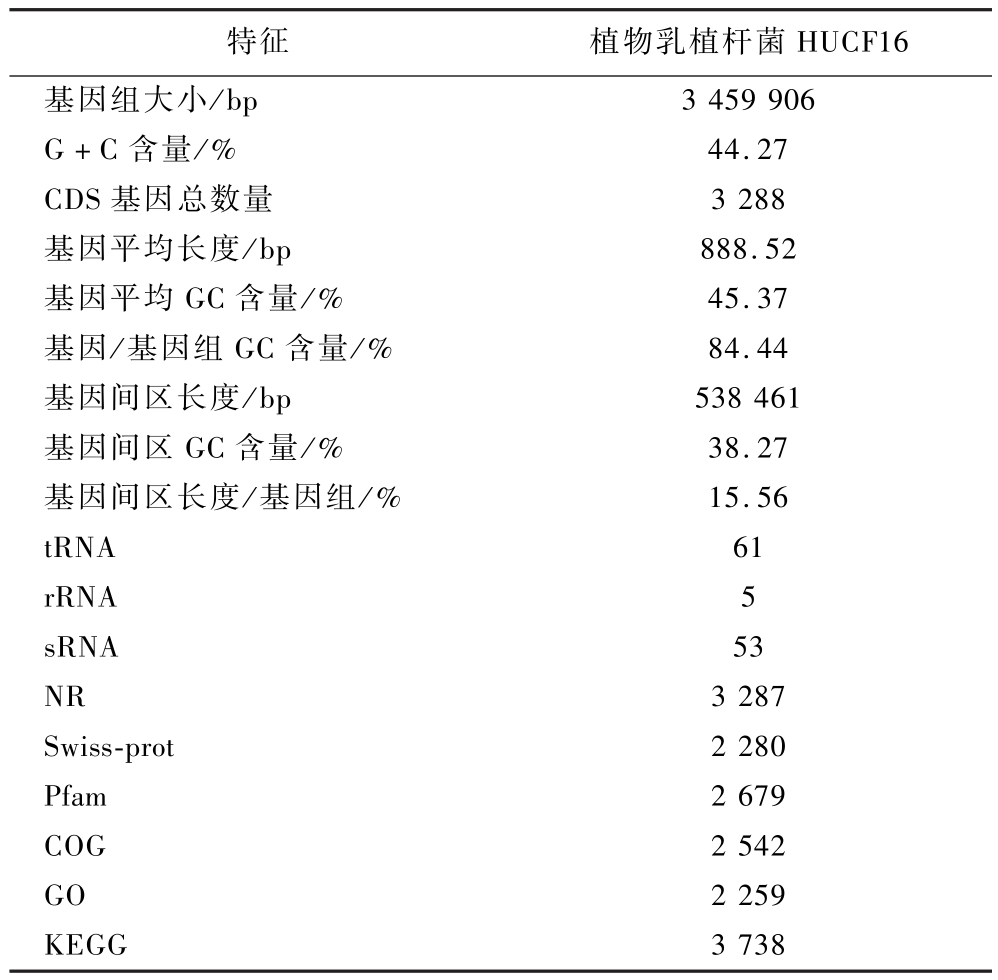
L.plantarum HUCF16 全基因组测序采用二代测序技术完成,测序数据经组装后获得高质量基因组序列,其基因组圈图如图1 所示。 该菌株基因组大小为3 459 906 bp,K-mer 分析覆盖率86. 48%,二代测序reads 比对覆盖率达98.94%,高覆盖率表明基因组组装完整性良好,为后续功能解析提供可靠数据支撑。

图1 植物乳植杆菌HUCF16 基因组图
Fig.1 Genome map of L.plantarum HUCF16
基因组核心特征显示,其GC 含量为44.27%,与已报道的植物乳植杆菌属菌株GC 含量(43.0% ~45.5%)高度吻合,反映该菌株在分类学上的典型性。 编码基因(coding sequence,CDS)共3 288 个,基因总长度2 921 445 bp,平均长度888.52 bp,基因区占基因组总长的84. 44%,该基因密度与L. plantarum WCFS1(基因占比83.9%)[9]接近,表明基因组编码区紧凑,功能基因富集程度较高。 此外,基因组包含tRNA 61个、rRNA 5 个及sRNA 53 个,RNA 元件数量满足菌株基础转录与翻译需求,与同类益生菌基因组RNA分布特征一致[10]。
表1为L. plantarum HUCF16 基因组特征表,3 288个CDS 中,NR 数据库注释率达99.97%(3 287 个),Swiss-Prot 数据库注释率69.34% (2 280 个),Pfam、COG、GO 及KEGG 数据库注释率分别为81. 54%(2 679个)、77.31% (2 542 个)、68.69% (2 259 个)和68.69%(2 259 个)。 KEGG 数据库注释到2 259个功能基因,意味着该菌株近70% 的编码基因可关联到明确的代谢通路,为后续基因尺度代谢网络构建及代谢功能解析奠定基础。 对比L. plantarum ZJ316(KEGG 注释率 65. 2%)[11] 和 L. plantarum P-8(KEGG 注释率67.8%)[12],本菌株KEGG 注释率更优,提示其代谢通路注释完整性更高,更利于后续多组学关联分析。
表1 植物乳植杆菌HUCF16 基因组特征表
Table 1 Genomic characteristics of L.plantarum HUCF16
特征植物乳植杆菌HUCF16基因组大小/bp3 459 906 G +C 含量/%44.27 CDS 基因总数量3 288基因平均长度/bp888.52基因平均GC 含量/%45.37基因/基因组GC 含量/%84.44基因间区长度/bp538 461基因间区GC 含量/%38.27基因间区长度/基因组/%15.56 tRNA61 rRNA5 sRNA53 NR3 287 Swiss-prot2 280 Pfam2 679 COG2 542 GO2 259 KEGG3 738
2.2 植物乳植杆菌HUCF16 菌株功能基因解析
L.plantarum HUCF16 的2 542 个基因被COG 数据库注释,占总基因数的77.31%,注释率高于L.plantarum P-8(75.1%)和L. plantarum ZJ316(73.8%),表明该菌株功能基因的分类学解析较为全面。 注释结果如图2 所示,转录相关基因287 个(11.29%),碳水化合物转运与代谢基因304 个(11.96%),氨基酸转运与代谢基因223 个(8. 77%),三类基因占比合计32.02%,反映菌株在遗传信息表达、碳氮源利用方面的核心潜力。 碳水化合物转运与代谢基因占比高于同类菌株L.plantarum WCFS1(10.8%),提示其对不同碳源的转运和代谢适应性更强,这一特性与食品发酵中碳源高效转化的需求高度契合。 脂质转运与代谢(111 个)、酶转运与代谢(142 个)及无机离子转运与代谢(134 个)相关基因的存在,进一步支撑菌株对复杂营养环境的利用能力。 细胞壁、膜及包膜生物合成相关基因180 个,包括76 个COGs,其中数量最多的是COG0438(细胞壁生物合成的糖基转移酶)、COG1388(LysM 重复结构域蛋白)、COG1136(ABC转运体)、COG4932 (MSCRAMM 家族)、COG0451(糖基供体)。 这类基因参与细菌细胞壁结构构建和细胞膜稳定性调控,是菌株在肠道黏膜或发酵基质中黏附定殖的关键。 该数量高于L. plantarum ST-Ⅲ(162个),佐证L. plantarum HUCF16 具有较强的定殖潜力[13]。 次生代谢产物生物合成、运输与代谢相关基因20 个,虽数量较少,但为菌株合成抗菌肽、类黄酮衍生物等功能产物提供了基因基础。
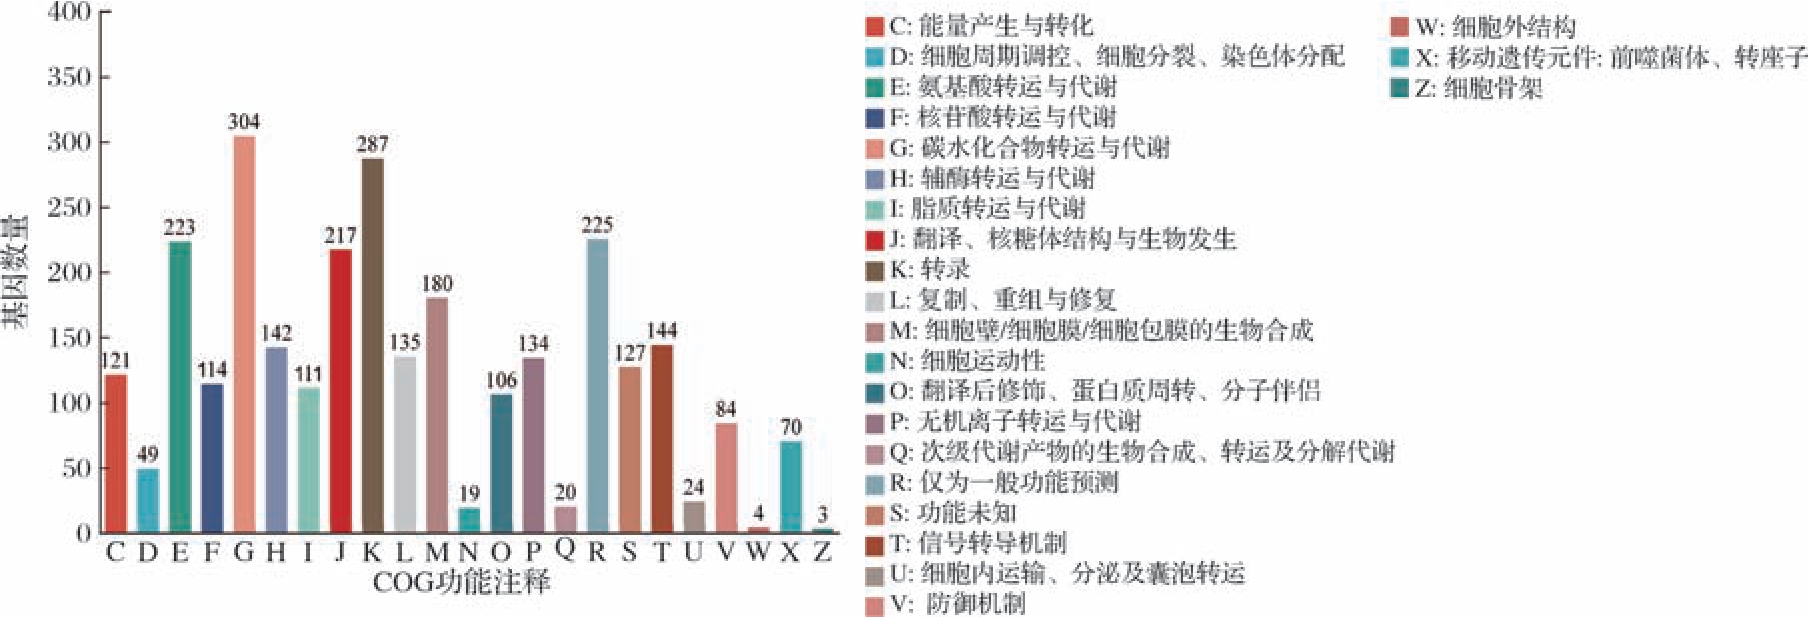
图2 植物乳植杆菌HUCF16 的COG 功能注释图
Fig.2 COG functional annotation map of L.plantarum HUCF16
GO 数据库注释如图3 所示,注释到2 259 个基因,占总基因数的68.7%,与L.plantarum 163(67.9%)注释率接近,功能分类覆盖细胞组成、分子功能和生物过程3 个维度。 生物过程中,代谢过程和细胞过程相关基因占主导,符合益生菌通过代谢活动发挥生理功能的核心特征。 分子功能方面,催化活性和结合相关基因占比最高,其中催化活性基因直接参与酶促反应,支撑碳水化合物降解、氨基酸转化等代谢过程,结合相关基因则参与底物识别、蛋白互作等关键环节,两类基因的富集为菌株代谢网络的高效运行提供保障。 细胞组成维度,细胞及细胞膜相关基因占比突出,与COG 注释中细胞壁合成基因的富集趋势一致,进一步印证菌株在细胞结构完整性和环境适应性方面的基因优势[14]。
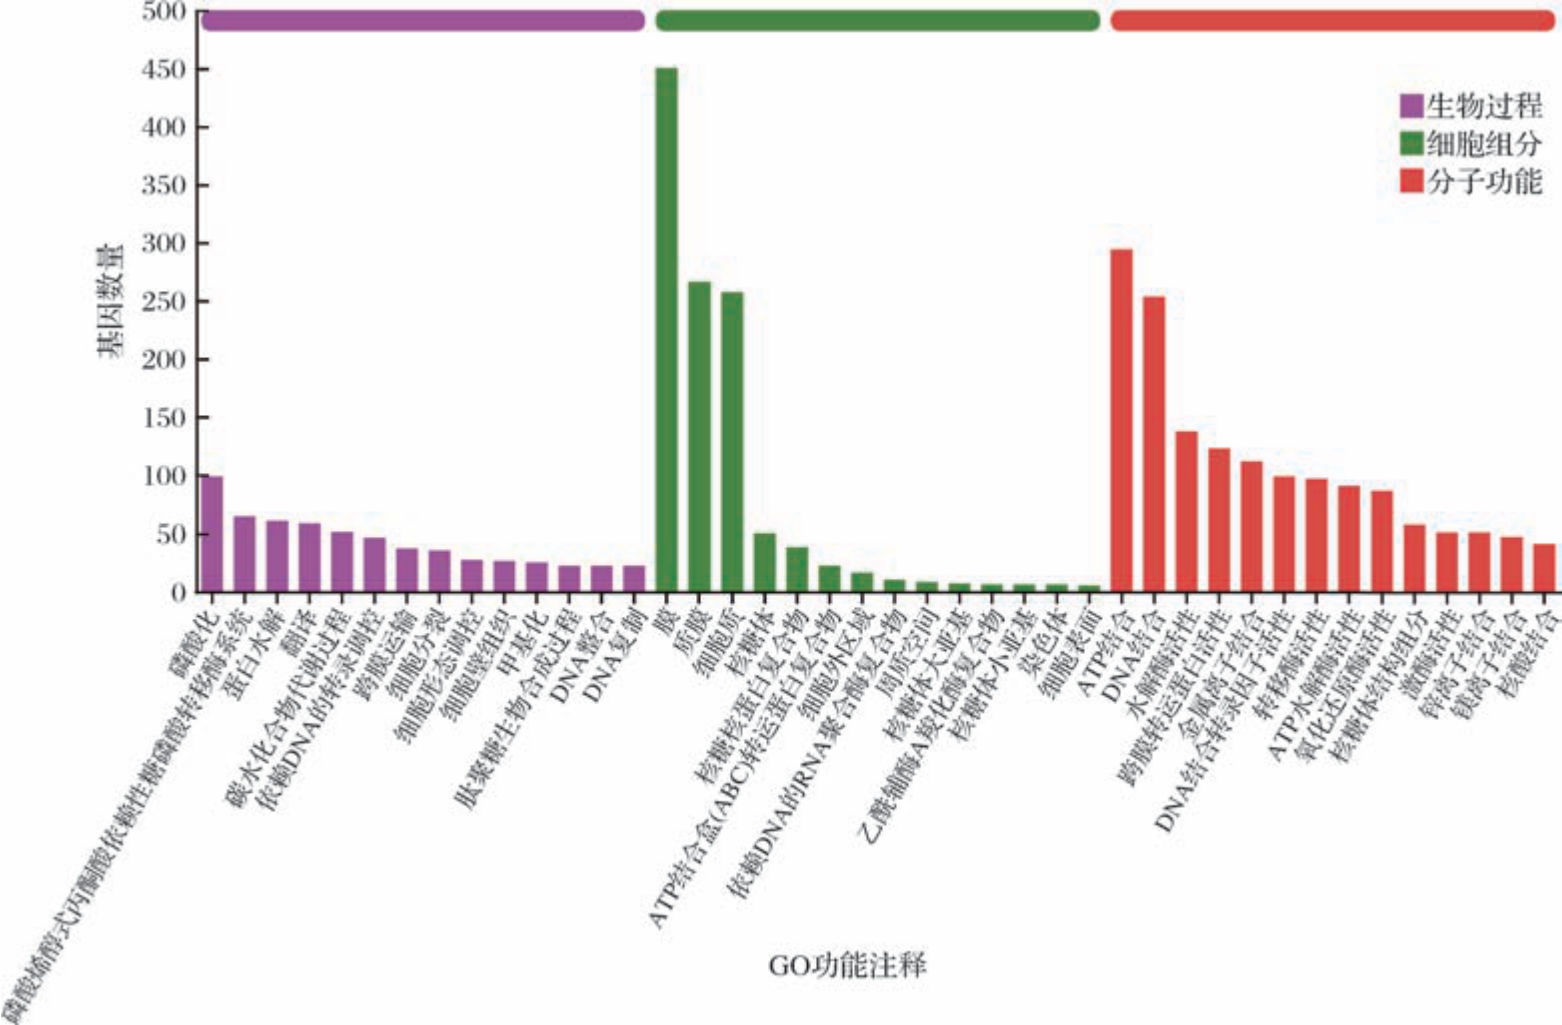
图3 植物乳植杆菌HUCF16 的GO 功能注释图
Fig.3 GO functional annotation map of L.plantarum HUCF16
KEGG 数据库注释如图4 所示,注释的2 259 个基因覆盖细胞过程、环境信息处理等6 个一级分类,其中代谢途径相关基因1 749 个,占比77.42%,显著高于L.plantarum WU14(72.3%),表明该菌株代谢网络完整且活跃,为发酵过程中功能代谢产物的合成提供了充足的基因支撑。 二级分类中,碳水化合物代谢基因276 个,涉及糖酵解、磷酸戊糖途径等关键通路,这类基因的富集使菌株能够高效利用发酵基质中的葡萄糖、果糖等碳源,转化生成乳酸、乙酸等短链脂肪酸。 氨基酸代谢基因175 个,可参与支链氨基酸降解、色氨酸代谢等过程,为生物活性肽、神经递质前体等功能产物的合成提供路径。 辅助因子和维生素代谢基因129 个,有助于菌株自身营养合成及发酵食品中维生素的富集[15]。 膜运输基因183 个和信号转导基因100 个,分别参与营养物质跨膜转运和环境信号响应,增强菌株对发酵过程中pH 变化、底物浓度波动等环境因素的适应性。 能量代谢基因95 个,保障代谢过程中的能量供应,与碳水化合物代谢、氨基酸代谢通路协同作用,维持菌株高效代谢活性[16]。

图4 植物乳植杆菌HUCF16 的KEGG 功能注释图
Fig.4 KEGG functional annotation map of L.plantarum HUCF16
碳水化合物转运与代谢基因的高占比(11.96%)决定了L.plantarum HUCF16 在糖酵解等核心代谢通路具有高效运行的潜力, 而氨基酸代谢基因(8.77%)的丰富性则为支链氨基酸降解、苏氨酸合成等代谢过程提供了遗传支撑,次生代谢相关基因虽数量有限,但可能与麦胚基质中黄酮类前体物质等的转化密切相关,基于此,基于基因尺度代谢网络进行分析。
2.3 植物乳植杆菌HUCF16 基因维度碳水化合物代谢与转化分析
基于L.plantarum HUCF16 基因尺度代谢网络模型分析,L. plantarum HUCF16 的糖酵解通路呈现完整的阶段性催化特征,覆盖糖磷酸化、裂解与异构、丙酮酸生成3 个核心环节。 糖磷酸化阶段,葡萄糖经多种激酶催化生成葡糖-6-磷酸,再转化为果糖6-磷酸,最终生成D-果糖-1,6-二磷酸,关键酶系的存在保障了碳源的初步活化。 果糖6-磷酸与葡糖-6-磷酸、D-果糖-1,6-二磷酸与果糖6-磷酸之间的可逆转化,赋予菌株在碳源波动环境中灵活调整代谢流向的能力,这一特性与食品发酵中复杂碳源基质的利用需求相适配[17]。
裂解与异构阶段,D-果糖-1,6-二磷酸经醛缩酶分解为甘油酮-P 和3-磷酸甘油醛,两者通过磷酸丙糖异构酶实现互变,提示提高该异构酶或醛缩酶活性可能成为强化碳源降解效率的靶点。 丙酮酸生成阶段,3-磷酸甘油醛经多步酶促反应最终生成丙酮酸,完成糖酵解核心代谢流,为后续乳酸、乙酸等发酵产物的合成提供前体[18]。
与KEGG 糖酵解标准通路对比发现,糖酵解代谢图如图5 所示,该菌株代谢物中缺乏关键中间体1,3-二磷酸甘油酸,该物质的生成依赖3-磷酸甘油醛脱氢酶的催化[19],据此推测菌株可能缺失编码该酶的基因。 这一代谢特点与L. plantarum SM-39(缺失相同基因)类似[20],可能通过替代途径完成丙酮酸生成,虽不影响糖酵解整体进程,但可能改变代谢速率或产物比例[21]。
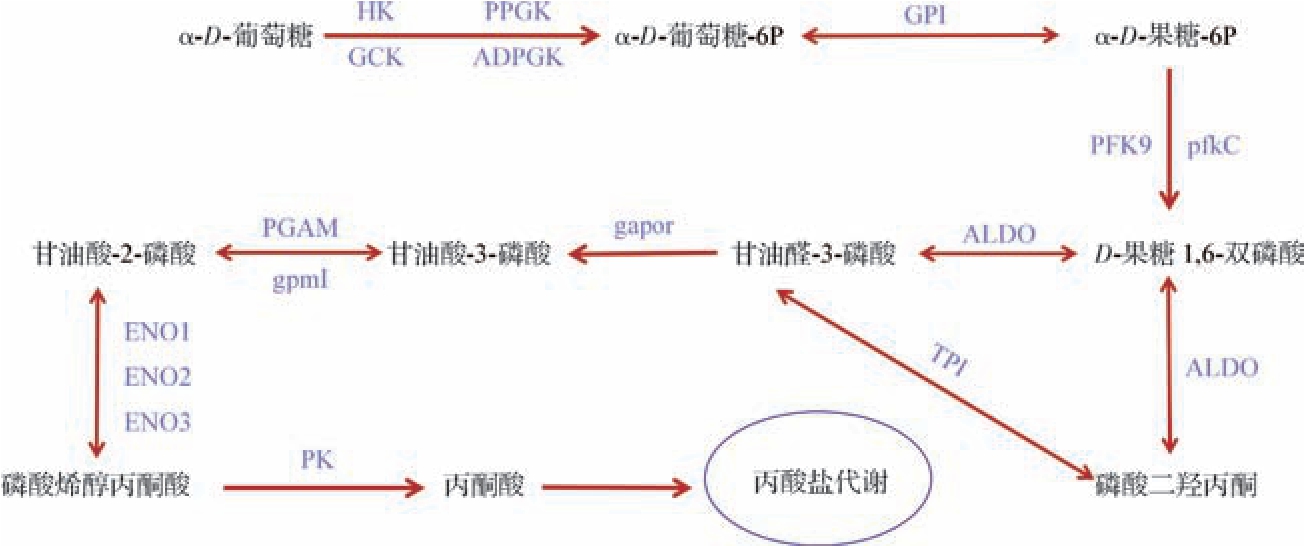
图5 植物乳植杆菌HUCF16 的糖酵解代谢图
Fig.5 Glycolytic metabolic map of L.plantarum HUCF16
L.plantarum HUCF16 糖酵解通路是其利用麦胚中淀粉、膳食纤维等碳水化合物的核心机制,其拥有276 个碳水化合物代谢基因(KEGG 注释),可通过编码糖磷酸化、裂解异构等阶段的关键酶,驱动糖酵解通路高效运行,最终生成丙酮酸等前体物质,为关键代谢物的潜在富集提供支撑,为了验证基因潜力通过代谢通路调控最终转化为产物差异的因果链条,进一步进行发酵麦胚提取物的代谢组分析。
2.4 植物乳植杆菌HUCF16 基因维度氨基酸代谢与转化分析
苏氨酸合成起始于L-4-天冬氨酰磷酸酯的转化,经天冬氨酸半醛脱氢酶催化生成L-天冬氨酸4-半醛,再通过高丝氨酸脱氢酶生成L-高丝氨酸。 L-高丝氨酸的双路径代谢特性的关键,部分参与半胱氨酸和蛋氨酸合成,部分经高丝氨酸激酶、苏氨酸合酶催化生成苏氨酸,体现菌株对含硫氨基酸和苏氨酸的合成潜力。 通路存在2 个核心调控节点,外源添加天冬氨酸半醛脱氢酶可促进L-天冬氨酸生成,联合天冬氨酸激酶可重建L-4-天冬氨酰磷酸酯自循环合成,可提升苏氨酸产率,这与现有研究保持一致[22],这一发现为发酵食品中苏氨酸的定向富集提供了基因工程改造思路。 代谢组数据未检测到L-天冬氨酸,结合其可通过丙氨酸-天冬氨酸代谢网络合成的特性,推测菌株可能缺失天冬氨酸代谢相关基因或存在通路调控异常,这一缺陷可能影响苏氨酸合成效率,需通过外源添加前体物质优化发酵条件。
菌株缺失完整的丝氨酸合成通路,代谢组数据中未检测到起始物3-磷酸羟基丙酮酸和终产物丝氨酸,提示相关合成酶系基因缺失或表达沉默。 对比其完整的支链氨基酸降解能力,这种选择性代谢缺陷可能是进化过程中形成的特殊营养依赖策略:通过降解环境中的氨基酸获取生长所需营养,同时精简自身合成系统以降低能量消耗[23]。 该特性使菌株更适应富含蛋白质或氨基酸的发酵基质(如乳制品、豆制品),与食品发酵工业中常用菌株的营养利用特征一致[24]。
亮氨酸降解通路中,菌株具备完整酶系,从3-甲基丁酰辅酶A 经脱氢、羧化、水合、裂解等步骤,最终生成乙酰乙酸和乙酰辅酶A,不仅证实菌株的亮氨酸降解能力,还能为能量代谢提供关键前体,与发酵过程中菌株的能量供应需求相匹配。 缬氨酸降解遵循哺乳动物经典路径,经脱氨基、氧化脱羧、氧化、羧化、水解等反应生成丙酰-CoA 并进入三羧酸循环。 通路关键酶BCKDH 的完整性具有重要意义,该酶缺陷与枫糖尿症相关,而下游代谢异常可能引发甲基丙二酸血症,提示菌株在支链氨基酸代谢调控研究中具有潜在应用价值。 异亮氨酸降解通路高度保守且完整,初始反应与缬氨酸降解共享同工酶,最终生成乙酰-CoA 和丙酰-CoA。 与哺乳动物代谢途径的差异在于,菌株通过独特的羧化-变位酶系统将丙酰-CoA 导入三羧酸循环,这一细菌特有的能量转化策略,可提高碳源利用率,增强菌株在发酵环境中的生长优势[25]。
上述氨基酸代谢通路的特征与基因组中175 个氨基酸代谢基因(KEGG 注释)直接对应,完整的支链氨基酸降解通路依赖于对应的降解酶基因表达,最终生成乙酰-CoA 等能量前体,支撑菌株在麦胚基质中的生长代谢;苏氨酸合成通路的调控节点基因为代谢组中2-羟基-4-甲硫基丁酸等氨基酸衍生物的富集提供了通路基础;而丝氨酸合成通路的缺失则导致菌株依赖麦胚基质中的丝氨酸供给,间接影响了相关代谢产物的生成,这一关联逻辑验证了基因组潜力对代谢通路的调控作用及最终的产物输出特征。
2.5 植物乳植杆菌HUCF16 发酵麦胚提取物非靶向代谢组分析
L. plantarum HUCF16 发酵麦胚后,代谢组的整体差异与菌株基因组及代谢网络的功能特征高度契合,具体表现为组间代谢物分离显著、功能代谢通路定向富集。 PCA 分析(图6-a) 发现对照组(CON)与发酵组(HUCF16)的代谢物在主成分维度呈现明显分离(成分1 解释54.6%的变异),表明菌株发酵可显著重塑麦胚的代谢物组成。 这一差异的形成,与菌株基因组中11. 96% 的碳水化合物转运及代谢基因直接相关,这类基因赋予菌株高效利用麦胚中淀粉、膳食纤维等多糖底物的能力,驱动代谢流从麦胚固有代谢向菌株介导的发酵代谢重构[26]。 结合菌株糖酵解通路的特性(缺失3-磷酸甘油醛脱氢酶但存在替代代谢途径),其仍能高效生成丙酮酸等前体物质,为后续代谢物的合成提供基础,这是组间代谢物差异显著的核心驱动因素[27]。

图6 植物乳植杆菌HUCF16 发酵麦胚非靶代谢组学分析
Fig.6 Non-target metabolomics analysis of wheat germ fermented by L.plantarum HUCF16
基于Δmass 和mzCloud Best Match≥80 进行数据过滤,以VIP >1 和|log2 fold change| >1 为标准继续筛选显著差异代谢物,如图6-b 和表2,发酵麦胚的代谢物富集分析显示(图6-c),黄酮代谢(阿魏酸)、苯丙烷代谢、脂类代谢通路、氨基酸代谢与肽类合成通路是核心富集通路。 从基因组层面看,菌株虽仅含20 个次生代谢相关基因,但麦胚本身富含黄酮苷等前体物质,而菌株碳水化合物代谢网络(糖酵解、磷酸戊糖途径)提供的能量与中间产物,可支撑黄酮前体的生物转化(如苷键水解、结构修饰),促进游离黄酮的富集。 这一过程与食品发酵中乳杆菌强化原料功能成分的作用一致,可提升麦胚的抗氧化、抗炎等功能价值[28]。
表2 发酵麦胚的差异代谢物
Table 2 Differential metabolites of fermented wheat germ
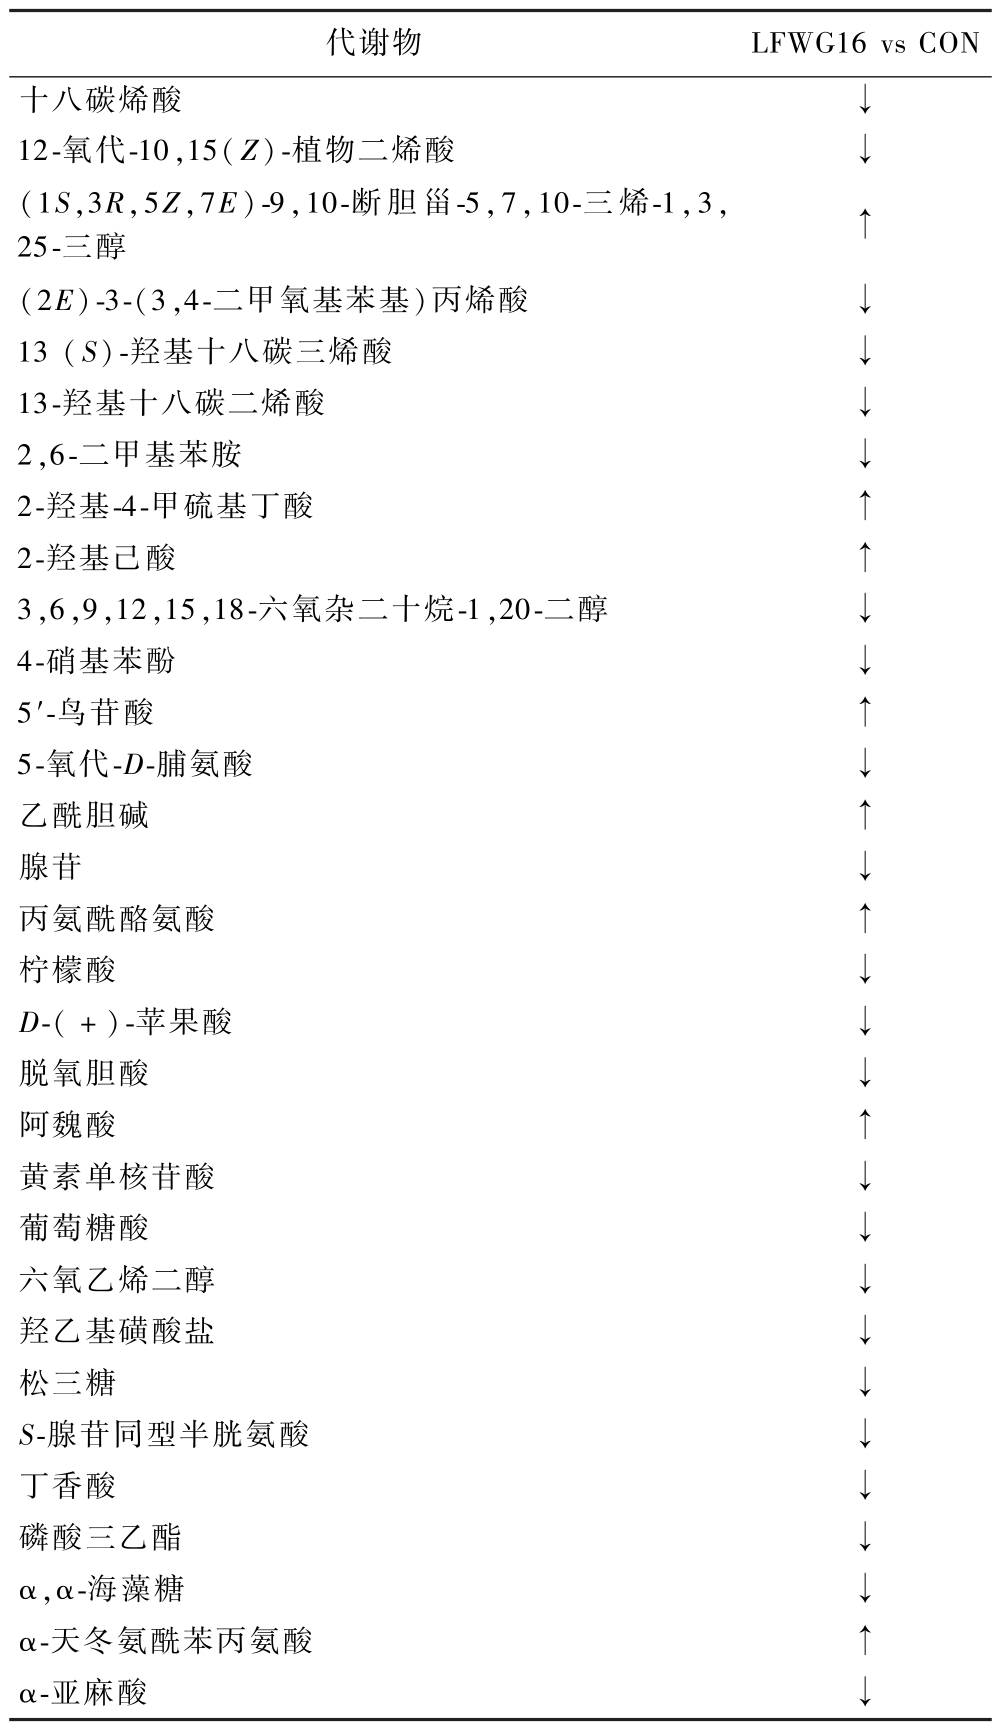
代谢物LFWG16 vs CON十八碳烯酸↓12-氧代-10,15(Z)-植物二烯酸↓(1S,3R,5Z,7E)-9,10-断胆甾-5,7,10-三烯-1,3,25-三醇↑(2E)-3-(3,4-二甲氧基苯基)丙烯酸↓13 (S)-羟基十八碳三烯酸↓13-羟基十八碳二烯酸↓2,6-二甲基苯胺↓2-羟基-4-甲硫基丁酸↑2-羟基己酸↑3,6,9,12,15,18-六氧杂二十烷-1,20-二醇↓4-硝基苯酚↓5′-鸟苷酸↑5-氧代-D-脯氨酸↓乙酰胆碱↑腺苷↓丙氨酰酪氨酸↑柠檬酸↓D-( +)-苹果酸↓脱氧胆酸↓阿魏酸↑黄素单核苷酸↓葡萄糖酸↓六氧乙烯二醇↓羟乙基磺酸盐↓松三糖↓S-腺苷同型半胱氨酸↓丁香酸↓磷酸三乙酯↓α,α-海藻糖↓α-天冬氨酰苯丙氨酸↑α-亚麻酸↓
注:“↑”表示表达量上升,“↓”表示表达量下降。
另一类富集通路为鞘脂代谢、氨基酸及其衍生物代谢(图6-d)。 结合菌株氨基酸代谢特征,其具备完整的支链氨基酸降解通路,可利用麦胚中的支链氨基酸生成乙酰-CoA 等前体,进而参与鞘脂的合成;同时,菌株缺失丝氨酸合成通路,需依赖麦胚中的丝氨酸供给,这一营养依赖策略驱动了氨基酸衍生物代谢通路的富集,菌株将外源氨基酸转化为活性衍生物,既满足自身生长需求,也丰富了发酵产物的营养结构[29]。
综上,代谢组层面的差异代谢物及富集通路均能追溯至基因组中的功能基因特征和代谢网络的调控规律:碳水化合物代谢基因驱动糖酵解通路调控糖类物质转化,氨基酸代谢基因支撑支链氨基酸降解与活性衍生物合成,次生代谢相关基因协同基质特性促进黄酮类成分富集,三者共同构建了“功能基因→代谢通路→发酵产物”的完整关联体系,明确了菌株适配麦胚基质的核心代谢策略。
3 结论
本研究通过全基因组测序、功能基因注释及非靶向代谢组分析,系统揭示了L. plantarum HUCF16 的基因组特征、代谢网络潜力及发酵麦胚的功能强化机制。 该菌株基因组组装完整性高,GC 含量、基因密度等核心特征符合植物乳植杆菌属分类学典型性,编码基因中碳水化合物转运与代谢、氨基酸代谢相关基因富集,且细胞壁生物合成基因数量优势显著,为其环境适应性和定殖能力提供了基因支撑。 经COG、GO、KEGG 数据库注释,证实该菌株代谢网络完整且活跃,尤其是糖酵解通路虽缺失3-磷酸甘油醛脱氢酶,但通过替代途径维持高效碳源转化,支链氨基酸降解通路完整且保守,而丝氨酸合成通路缺陷形成的营养依赖策略,使其更适配食品发酵基质。 非靶向代谢组分析表明,L. plantarum HUCF161 发酵可显著重塑麦胚代谢物组成,定向富集黄酮类、氨基酸衍生物等功能成分,核心富集的黄酮代谢、苯丙烷代谢等通路,与基因组功能基因特征及代谢网络调控逻辑高度一致。 综上,L. plantarum HUCF16 具备高效碳氮源利用能力、良好的环境适应性及功能代谢物合成潜力,其独特的代谢特征使其在麦胚等功能食品发酵中具有重要应用价值,同时为通过基因工程改造定向优化发酵产物、提升食品功能特性提供了理论依据和技术靶点。
[1] Tanaskovic' S J, Šekuljica N, Jovanovic' J, et al. Upgrading of valuable food component contents and anti-nutritional factors depletion by solid-state fermentation:A way to valorize wheat bran for nutrition[J]. Journal of Cereal Science, 2021, 99:103159.
[2] 伍娟, 曾晓娇, 程宇, 等. 乳酸菌发酵提高麦胚可溶性蛋白和总酚含量及抑制脂质体氧化能力的研究[J]. 食品工业科技,2016, 37(6):233 -238.Wu J, Zeng X J, Cheng Y, et al. Study on using lactic acid bacteria improve the content of soluble protein and total phenol of wheat germ and its ability to inhibit oxidation of liposome[J]. Science and Technology of Food Industry, 2016, 37(6):233 -238.
[3] Li X N, Wu Y H, You Y M, et al. Omics-driven insight into Lactiplantibacillus plantarum fermentation in Suansun:Connecting microbial dynamics to flavor and metabolic pathways[J]. Food Microbiology, 2025, 132:104851.
[4] Bayat E, Moosavi-Nasab M, Fazaeli M, et al. Wheat germ fermentation with Saccharomyces cerevisiae and Lactobacillus plantarum:Process optimization for enhanced composition and antioxidant properties in vitro[J]. Foods, 2022, 11(8):1125.
[5] Kumar U, Raj S, Sreenikethanam A, et al. Multi-omics approaches in plant-microbe interactions hold enormous promise for sustainable agriculture[J]. Agronomy, 2023, 13(7):1804.
[6] Ali M, Yang T X, He H, et al. Plant biotechnology research with single-cell transcriptome:Recent advancements and prospects[J].Plant Cell Reports, 2024, 43(3):75.
[7] Vila-Real C, Costa C, Pimenta-Martins A, et al. Novel fermented plant-based functional beverage:Biological potential and impact on the human gut microbiota[J]. Foods, 2025, 14(3):433.
[8] Kong X G, Guo Z A, Yao Y, et al. Acetic acid alters rhizosphere microbes and metabolic composition to improve willows drought resistance [ J]. Science of the Total Environment, 2022, 844:157132.
[9] Kleerebezem M, Boekhorst J, van Kranenburg R, et al. Complete genome sequence of Lactobacillus plantarum WCFS1[J]. Proceedings of the National Academy of Sciences of the United States of America, 2003, 100(4):1990 -1995.
[10] Garcia-Gonzalez N, Bottacini F, van Sinderen D, et al. Comparative genomics of Lactiplantibacillus plantarum:insights into probiotic markers in strains isolated from the human gastrointestinal tract and fermented foods[J]. Frontiers in Microbiology, 2022, 13:854266.
[11] Li P, Li X, Gu Q, et al. Comparative genomic analysis of Lactobacillus plantarum ZJ316 reveals its genetic adaptation and potential probiotic profiles[J]. Journal of Zhejiang University:Science. B,2016, 17(8):569 -579.
[12] Jehma N, Chaichana N, Boonsan J, et al. Characterization and genomic analysis of Lactiplantibacillus plantarum LP8 as a probiotic candidate for medical applications [J]. Data in Brief, 2025,60:111555.
[13] Nöldeke E R, Stehle T. Unraveling the mechanism of peptidoglycan amidation by the bifunctional enzyme complex GatD/MurT:A comparative structural approach[J]. International Journal of Medical Microbiology, 2019, 309(6):151334.
[14] Liu Y Q, Jiao N Z, Xu Zhong K, et al. Diversity and function of mountain and polar supraglacial DNA viruses[J]. Science Bulletin, 2023, 68(20):2418 -2433.
[15] Hirasawa T, Saito M, Yoshikawa K, et al. Integrated analysis of the transcriptome and metabolome of Corynebacterium glutamicum during penicillin-induced glutamic acid production[J]. Biotechnology Journal, 2018, 13(5):e1700612.
[16] Eydallin G, Viale A M, Morán-Zorzano M T, et al. Genome-wide screening of genes affecting glycogen metabolism in Escherichia coli K-12[J]. FEBS Letters, 2007, 581(16):2947 -2953.
[17] Marschoun S, Rapp P, Wagner F. Metabolism of hexoses and pentoses by Cellulomonas uda under aerobic conditions and during fermentation[J]. Canadian Journal of Microbiology, 1987, 33(11):1024 -1031.
[18] Graham Solomons J T, Johnsen U, Schönheit P, et al. 3-Phosphoglycerate is an allosteric activator of pyruvate kinase from the hyperthermophilic archaeon Pyrobaculum aerophilum[J]. Biochemistry,2013, 52(34):5865 -5875.
[19] Sun L, Tang D J, Zhang Q N, et al. The role of glyceraldehyde-3-phosphate dehydrogenase in 2-ketogluconic acid industrial production strain Pseudomonas plecoglossicida JUIM01[J]. Foods,2025,14(22):3830.
[20] Cui Y H, Wang M H, Zheng Y K, et al. The carbohydrate metabolism of Lactiplantibacillus plantarum[J]. International Journal of Molecular Sciences, 2021, 22(24):13452.
[21] Balasubramanian S, Subramanian R. Metabolic perturbation of acrylate pathway in Lactobacillus plantarum[J]. Biocatalysis and Biotransformation, 2019, 37(4):310 -316.
[22] Shi A Q, Liu Y, Jia B L, et al. Metabolic engineering of microorganisms to produce L-aspartate and its derivatives[J]. Fermentation, 2023, 9(8):737.
[23] Takenaka S, Nakabayashi R, Ogawa C, et al. Characterization of surface Aspergillus community involved in traditional fermentation and ripening of katsuobushi[J]. International Journal of Food Microbiology, 2020, 327:108654.
[24] Liu Z B, Wang Z Y, Sun J Y, et al. The dynamics of volatile compounds and their correlation with the microbial succession during the traditional solid-state fermentation of Gutian Hong Qu glutinous rice wine[J]. Food Microbiology, 2020, 86:103347.
[25] Liu X T, Feng X J, Ding Y M, et al. Characterization and directed evolution of propionyl-CoA carboxylase and its application in succinate biosynthetic pathway with two CO2 fixation reactions[J].Metabolic Engineering, 2020, 62:42 -50.
[26] Nabavi S M, Šamec D, Tomczyk M, et al. Flavonoid biosynthetic pathways in plants:Versatile targets for metabolic engineering[J].Biotechnology Advances, 2020, 38:107316.
[27] Mekonnen S A, Merenstein D, Fraser C M, et al. Molecular mechanisms of probiotic prevention of antibiotic-associated diarrhea[J]. Current Opinion in Biotechnology, 2020, 61:226 -234.
[28] Wang Z C, Zheng Y, Zhou X Y, et al. Effect of Lactobacillus fermentation on the structural feature, physicochemical property, and bioactivity of plant and fungal polysaccharides:A review [J].Trends in Food Science & Technology, 2024, 148:104492.
[29] Gong Z J, Chen K X, Zhang Y F, et al. Revealing the regulatory mechanisms of amino acids in co-fermentation of jujube pulp by Lachancea thermotolerans and Lactiplantibacillus plantarum:Insights from flavor characterization and metabolomic analysis[J]. Food Research International, 2025, 222(Pt 1):117746.