交链格孢(Alternaria alternata)属于分布广泛的植物病原真菌,其宿主种类繁多,可引起100 余种农作物与观赏植物发生病害[1]。 交链格孢能产生多种具有生物毒性的次级代谢产物,包括交链孢酚(alternariol,AOH)、交链孢酚单甲醚(alternariol monomethyl ether,AME)和交链孢菌酮酸(tenuazonic acid,TeA)等[2]。 其中TeA 是链格孢菌毒素中唯一的含氮代谢物,是公认最重要、活性最强的链格孢霉毒素。 该毒素不仅表现出急性毒性、亚急性毒性、胚胎毒性和细胞毒性,还具有潜在的致癌风险,对生态系统和人类健康均构成严重威胁[3]。 欧洲食品安全局(European Food Safety Authority,EFSA)采用毒理学关注阈值(threshold of toxicological concern,TTC)法,对食品中链格孢毒素给人类健康带来的潜在风险开展评估,并设定TeA 的TTC 值是1 500 ng/(kg bw·d)[2,4],该物质的污染已蔓延至全球范围,在瓜果、蔬菜、油料种子及谷物等各类农产品中均能被高频检出[5],对食品安全构成持续性挑战。
在微生物应对环境胁迫的过程中,相容性溶质的积累是其重要的生理策略之一。 这类物质种类多样,包括甘油、脯氨酸、海藻糖、甘露醇等,它们可通过调节细胞渗透压、稳定大分子结构与功能、维持细胞膜完整性等多种机制,帮助细胞抵御渗透胁迫、氧化应激、温度变化等多种逆境[6]。 其中,甘油是真菌中一类关键的相容性溶质与能量代谢中间体,其在细胞内的高效合成与积累对于维持细胞稳态、抵抗环境波动至关重要[7]。 在真菌中,甘油主要通过甘油-3-磷酸脱氢酶催化的反应生成。 该酶催化二羟丙酮磷酸还原为甘油-3-磷酸,随后经甘油磷酸酶作用脱磷酸化为甘油[8]。 在丝状真菌和酵母体内,通常存在2 种甘油-3-磷酸脱氢酶同工酶,这2 种同工酶分别由Gpd1和Gpd2 基因编码。 其中,Gpd1 被广泛认为是响应外界渗透压胁迫的主要功能基因[9]。 研究表明,Gpd1基因在多种病原真菌的致病力中扮演着不可或缺的角色。 例如,在大丽轮枝菌(Verticillium dahliae)中的研究发现,其胞质甘油-3-磷酸脱氢酶基因VdGpd 的功能较为特殊。 过表达VdGpd 不仅没有增强菌株的毒力,反而显著抑制了分生孢子的产生并降低了对寄主棉花的致病力[10]。 而在炭疽菌(Colletotrichum gloeosporioides)中,Gpd1 也被证实是分生孢子产生、营养生长所必需的[11]。 这些证据共同表明,甘油-3-磷酸脱氢酶在不同真菌病原体中的功能具有物种特异性,其对真菌分生孢子产生、营养生长及致病力的调控作用并非保守,而是依赖物种自身的代谢特性与侵染策略。
在交链格孢菌中,研究已证实高渗透性甘油信号(high osmolarity glycerol,HOG)途径中AaHOG 基因可以调控链格孢毒素的生物合成,同时在寄主定植过程中发挥关键作用[12]。 当细胞遇到高渗透条件(如盐分、甘油或葡萄糖浓度升高)时,HOG 通路被激活以调节细胞反应[13]。 然而,HOG 途径中Gpd1 的功能尚未被报道,其是否参与菌株生长发育、胁迫响应、致病性及毒素合成等生物学过程仍属未知。 鉴于此,本研究拟通过基因敲除技术构建Gpd1 缺失突变体及回补菌株,系统分析该基因在交链格孢中菌落生长、产孢能力、TeA 合成及相关基因表达、氧化与渗透胁迫响应、致病性及黑色素合成中的作用,旨在明确Gpd1的生物学功能,为进一步探究交链格孢致病和毒素生物合成的调控机制提供借鉴和参考。
1 材料与方法
1.1 材料与试剂
1.1.1 菌株及质粒
野生型MY-4 由本实验从腐烂的黄桃上分离得到;Gpd1 基因缺失菌株ΔGpd1、Gpd1 基因缺失回补菌株Gpd1-c 均由本实验室构建;质粒pFL2 由上海市农业科学院农产品质量标准与检测技术研究所提供;质粒pUCATPH[含有潮霉素磷酸转移酶(hygromycin B phosphotransferase,HPH)基因],上海纽普生物科技有限公司。
1.1.2 主要试剂与耗材
PDA 培养基,国药集团化学试剂有限公司;TeA标准品,青岛普瑞邦生物工程有限公司;TransZol Up、qPCR 试剂、反转录试剂,北京全式金生物技术股份有限公司;2 ×Phanta Max Master Mix DNA 聚合酶,南京诺唯赞生物科技有限公司;潮霉素B,Sigma;G418,生工生物工程股份有限公司;T4 连接酶、内切酶PstⅠ、BamHⅠ,美国赛默飞世尔科技公司;色谱甲酸、乙腈,上海安谱实验科技股份有限公司;0.22 μm 微孔滤膜,天津市领航实验设备股份有限公司;25 ×16 血球计数板,上海市求精生化试剂仪器有限公司。
1.2 仪器与设备
XEVO TQ-S 超高效液相色谱仪,美国Waters 公司;SK8210LHC 超声波清洗机,上海科导超声仪器有限公司;KG-AP40L 高压灭菌锅,日本TOMY 公司;MGC-300H 人工气候箱,上海一恒科学仪器有限公司;BH-2 显微镜,日本奥林巴斯公司;BN-5200HD 多管漩涡混合仪,上海般诺生物科技有限公司。
1.3 实验方法
1.3.1 Gpd1 基因生物信息学分析
以酿酒酵母(Saccharomyces cerevisiae)的Gpd1 为参考基因,通过NCBI 数据库(https:/ /www. ncbi.nlm.nih.gov/)获得交链格孢中同源蛋白Gpd1。 挑选不同真菌的同源蛋白序列,利用DNAMAN 进行多重序列比对,并进一步利用MEGA 11.0 软件采用邻近法(neighbor-joining method)构建遗传进化树,明确交链格孢Gpd1 与其他真菌同源蛋白的遗传进化关系。
1.3.2 Gpd1 基因缺失突变体构建
基于同源重组原理,运用split-PCR 方法经过PCR 扩增构建Gpd1 基因敲除突变体[14]。 参考NCBI数据库中的交链格孢中Gpd1 的序列,设计敲除引物(表1)。 以MY-4 DNA 为模板,使用引物Gpd1-AF/AR 和Gpd1-BF/分别扩增Gpd1 上、下游片段L1、L2。以pUCATPH 质粒为模板,使用引物HYG-F/HY-R 和YG-F/HYG-R 分别扩增潮霉素抗性基因HPH 的分片段H1 和H2。 采用split-PCR 方法使用引物Gpd1-AF/HY-R 将Gpd1 上游片段L1 和H1 片段融合,使用引物YG-F/Gpd1-BR 将Gpd1 下游片段L2 和H2 片段进行融合,通过聚乙二醇(polyethylene glycol,PEG)介导方法将L1H1 和L2H2 转至野生型菌株MY-4 原生质体中,潮霉素初步筛选转化子。 提取转化子的基因组DNA,用Gpd1-5F/Gpd1-6R 检测Gpd1,Gpd1-7F/Gpd1-H855R 和Gpd1-H856F/Gpd1-8R 分别检测上、下游重组片段,H850/H852 检测潮霉素基因,验证Gpd1 是否被成功敲除。
表1 本研究引物信息
Table 1 Primer information for this study

引物名称 引物序列(5′-3′)用途Gpd1-AFCCGCCTCTTCTATCCGTTCC扩增Gpd1 上游片段Gpd1-ARACGTTCATTTGTCCAAGCAGCAAAAGCGCGAAAAGACCACC Gpd1-BFCAAGTGGGCTGATCTGACCATACGCGGATCGTTATGGCTC扩增Gpd1 下游片段Gpd1-BRGGAGCTAAGACCCTCCCTGA HYG-F2GCTGCTTGGACAAATGAACGT HY-RTGACCTATTGCATCTCCCGC扩增HPH 片段YG-F2CAGGACATTGTTGGAGCCGA HYG-R2TGGTCAGATCAGCCCACTTG Gpd1-C-FACCTTATCATCGCAAAATCGACATCTCCCTTGCGGTTAAACTGA回补片段的扩增Gpd1-C-RCTTGTAGTTGCCGTCGTCCTAAGTTCACCT TGATGCCGTTC Gpd1-5FCTATCTGCTGCACAAAGGGCGpd1 敲除转化子和回补转化子的鉴定Gpd1-6RCCTTGCCGAACTTGACCATC Gpd1-7FACCAGTGTGATTCGGTAAGCA Gpd1-H855RGATAGTGGAAACCGACGCCC Gpd1-H856FTCTTGCAACGTGACACCCTGGpd1 敲除转化子和回补转化子的鉴定Gpd1-8RGCTAGTTTCCCATGTTCGTCTG H850TATTCCTTTGCCCTCGGACG H852AAAAAGCCTGAACTCACCGC β-actin-FGCATTCACGTATTCGACGCC β-actin-RGGTGTCATCCTCAACAGCCAqPCR 引物qTAS1-FGGTTCAACACAGTCGTATGGCTAC qTAS1-RTCGGAGGTGGCGGCAATG
1.3.3 回补菌株构建
以野生型菌株MY-4 基因组DNA 为模板,使用引物Gpd1-C-F/Gpd1-C-R,扩增含有自身启动子和终止序列的Gpd1 基因片段,连接入pFL2 构建重组质粒,PEG 介导方式导入敲除突变体ΔGpd1,G418 抗性初步筛选转化子。 提取转化子的基因组DNA,用Gpd1-5F/Gpd1-6R、 Gpd1-7F/Gpd1-H855R、 Gpd1-H856F/Gpd1-8R 及H850/H852 这4 对鉴定引物验证Gpd1基因是否插入成功。 所用引物如表1 所示。
1.3.4 菌落表型观察、生长速率测定及产孢能力测定
将活化后的MY-4、ΔGpd1、Gpd1-c 分别接种到PDA 培养基上,28 ℃黑暗条件下培养,每天观察菌落形态变化,同时采用十字交叉法记录菌落直径。
将活化后的MY-4、ΔGpd1、Gpd1-c 分别点接于PDA 培养基上,在28 ℃、黑暗条件下培养7 d,随后于无菌操作条件下刮取分生孢子,Miracloth 滤布过滤去除菌丝,收集孢子滤液,采用无菌去离子水制备成分生孢子悬浮液。 通过显微镜进行孢子计数,并据此计算各菌株的产孢量。 按公式(1)计算:
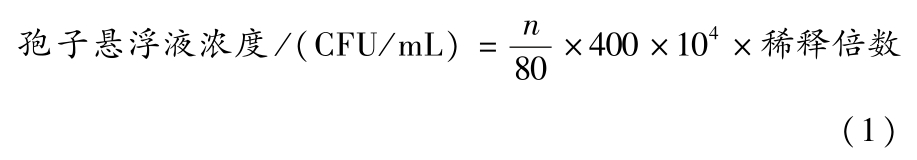
式中:n,25 ×16 规格的血球计数板中5 个中格的孢子量。
1.3.5 产毒能力测定
菌株产毒量的测定,参照本实验室建立的方法[15]。 待MY-4、ΔGpd1、Gpd1-c 菌株在PDA 培养基上培养7 d 后,将菌落连同培养基一并转移至50 mL离心管,并加入20 mL 含0.1%(体积分数)甲酸的乙腈溶液,超声提取1 h,涡旋振荡0.5 h,取上清液稀释100 倍,经涡旋振荡及0.22 μm 聚四氟乙烯滤膜过滤,利用超高效液相色谱-串联质谱对滤液进行TeA 毒素含量的测定。 仪器参数设置:色谱柱为ACQUITY UPLC BEH-C18 色谱柱(100 mm ×3.0 mm,2.5 μm),流速0.4 mL/min,进样量3 μL,柱温40 ℃;流动性为A 相为甲醇,B 相为5 mmol/L 乙酸铵溶液;采用梯度洗脱条件,0 min:10% A;1 min,10% A;5 min,90% A;6 min,90% A;6.5 min,10% A;8 min,10% A;质谱条件:采用电喷雾电离源正负离子模式同时扫描,扫描方式为多反应监测模式,脱溶剂温度为500 ℃,脱溶剂气为高纯氩气,脱溶剂气流量为800 L/h,锥孔反吹气流量为150 L/h,碰撞气为高纯氮气,碰撞气流量为0. 16 mL/min。 TeA 母离子(m/z) (198. 1[M+H]+)、子离子(m/z)(定性:125.0、定量:153.1)、碰撞能量16 eV 和12 eV。
1.3.6 荧光定量聚合酶链式反应(polymerase chain reaction,PCR)
将MY-4、ΔGpd1、Gpd1-c 菌株于PDA 培养基中28 ℃培养6 d,刮取适量菌丝置于RNase-free 的离心管中,液氮速冻,采用TransZol Up 试剂盒提取RNA,将提取的RNA 按照Easy Script One-Step gDNA Removal and CDNA Synthesiis SuperMix 试剂盒说明书反转录成cDNA。 选择β-actin 作为内参基因,按照PerfectStart Green qPCR SuperMix 试剂盒说明进行PCR扩增,利用2-ΔΔCT法分析统计数据。
1.3.7 胁迫因子敏感性测定
分别将活化后的MY-4、ΔGpd1、Gpd1-c 分别点接于含有50 mmol/L H2 O2、0.2 g/L Congo red、0.01%SDS、0.5 mol/L NaCl、100 mmol/L CaCl2和0.4 mol/L KCl 的PDA 培养基上,置于黑暗条件下培养7 d,培养期间,每日采用十字交叉法测量菌落直径,并据此计算菌落生长抑制率。 抑制率按公式(2)计算:
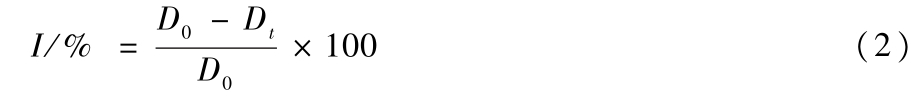
式中:I,菌落生长抑制率,%;D0,空白对照菌落直径,cm;Dt,处理组菌落直径,cm。
1.3.8 致病力检测
分别收集MY-4、ΔGpd1、Gpd1-c 菌株孢子悬浮液,并调节浓度至1 ×10⁶ CFU/mL。 将番茄进行表面消毒,用无菌打孔器在番茄表面均匀打出2 个小孔,分别加入20 μL 孢子悬浮液,并以接种等量无菌水作为对照。 所有接种后的番茄果实均置于内衬无菌湿润滤纸的带盖塑料托盘中,于28 ℃条件下贮存。 培养10 d 后,观察并统计发病情况,以分析各突变体菌株的侵染能力差异。
1.3.9 黑色素含量检测
参考曹英姿等[16]方法,分别刮取培养10 d 后的各试验菌丝体0.25 g,置于试管中,向每支试管加入30 mL 的1 mol/L NaOH 溶液,并将其置于100 ℃水浴中煮沸2 h。 反应结束后,使用经灭菌的单层滤纸漏斗对混合液进行过滤,滤液用1 mol/L NaOH 溶液定容。 最后,以1 mol/L NaOH 溶液作为空白对照,使用紫外分光光度计于400 nm 波长下测量其吸光度值。 菌丝中黑色素含量按公式(3)计算:

式中:y,黑色素含量,mg/g;x,400 nm 处的吸光值。
1.4 统计分析
所有试验均设3 个重复,利用Excel 2024 软件和Origin 2021 软件进行数据处理和作图,使用SPSS 28.0软件进行统计分析。
2 结果与分析
2.1 Gpd1 基因生物信息学分析
通过NCBI BLAST 比对酿酒酵母的Gpd1 蛋白,在交链格孢中鉴定出1 个NAD 依赖性甘油-3-磷酸脱氢酶,并将其命名为Gpd1。 该蛋白由417 个氨基酸组成。 为了探索Gpd1 在真菌系统进化中的保守性,将其与白色念珠菌(candida albicans)、黑曲霉(aspergillus niger)、禾谷镰刀菌(fusarium graminearum)、酿酒酵母、烟曲霉(aspergillus fumigatus)和alternaria incomplexa 中的同源蛋白进行多序列比对分析,结果显示Gpd1 同源蛋白具有较保守的氨基酸序列(图1-A)。 基于MEGA 11.0 构建的系统进化树进一步表明,交链格孢Gpd1 与alternaria incomplexa 的同源蛋白亲缘关系最近(图1-B)。

图1 Gpd1 同源蛋白的多重序列比对和系统发育分析
Fig.1 Multiple sequence alignment and phylogenetic analysis of Gpd1 ortholog proteins
2.2 Gpd1 敲除突变体及回补突变体菌株构建
基于同源重组原理(图2-a),本研究采用splitmarker PCR 技术构建基因敲除融合片段,经PEG 介导原生质体转化方法,获得抗潮霉素转化子。 对筛选所得转化子进行PCR 验证,结果如图2-b 显示:野生型菌株MY-4 仅能扩增出Gpd1 基因条带(泳道1);而敲除突变体ΔGpd1 可特异性扩增出Gpd1 上游-HPH 上游融合片段(泳道2)、HPH 下游-Gpd1 下游融合片段(泳道3)及潮霉素抗性基因HPH 条带(泳道4),却无法扩增出Gpd1 基因条带。 由此表明,Gpd1 基因已被HPH 基因置换,Gpd1 基因敲除突变体ΔGpd1 已成功构建。
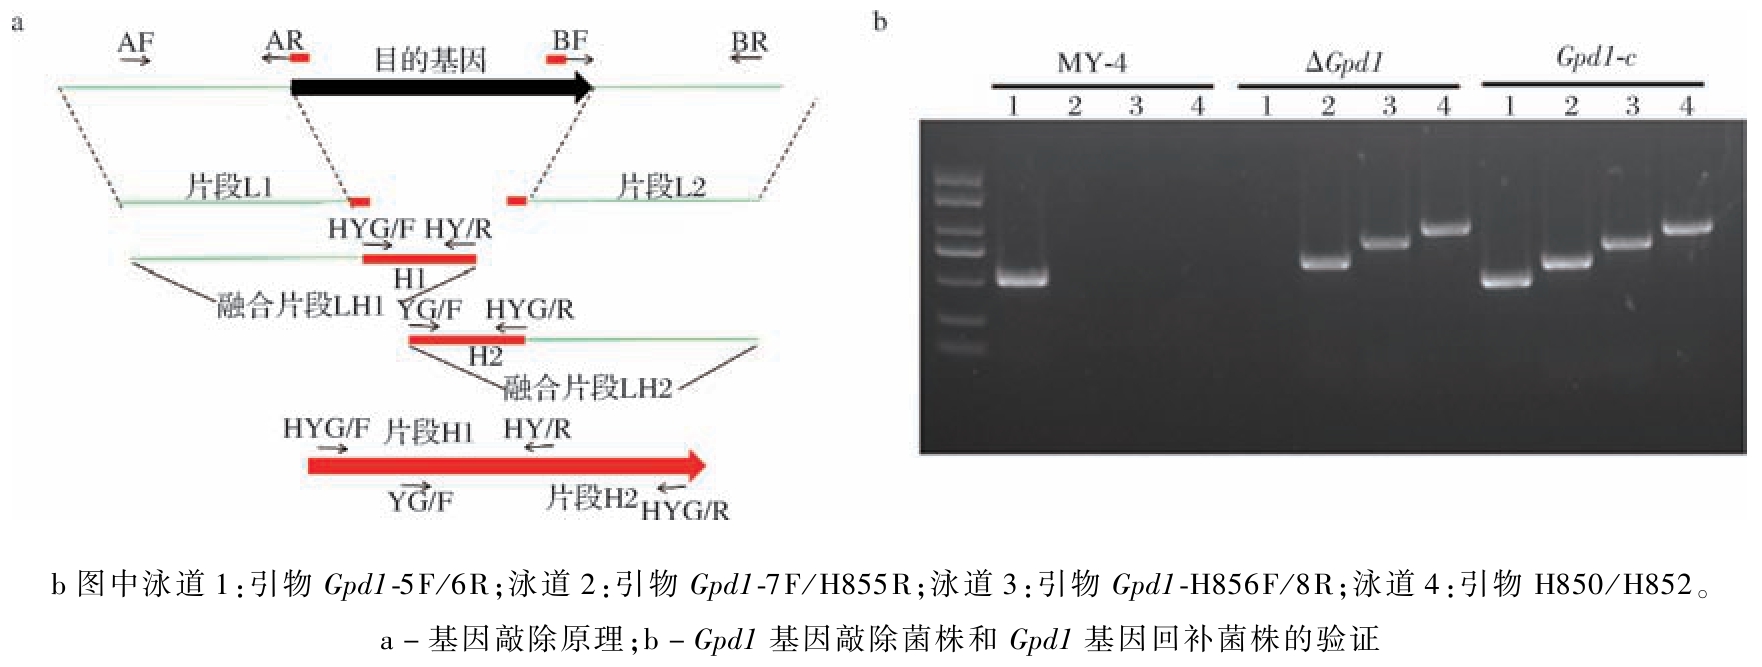
图2 Gpd1 基因敲除突变体和回补突变体的构建及鉴定
Fig.2 Construction and identification of Gpd1 deletion mutants and complementation strains
为验证ΔGpd1 的表型缺陷确由Gpd1 基因缺失引起,将含有完整Gpd1 基因的pFL2 重组载体转入ΔGpd1 的原生质体中,经G418 筛选获得转化子。PCR 验证结果显示,该回补突变体可同时扩增出Gpd1 基因条带(泳道1)、Gpd1 上游-HPH 上游融合片段(泳道2)、HPH 下游-Gpd1 下游融合片段(泳道3)及潮霉素抗性基因HPH 条带(泳道4)(图2-b),表明Gpd1 基因已成功回补至突变体基因组中,回补菌株Gpd1-c 构建成功。
2.3 Gpd1 基因缺失对交链格孢菌落形态、生长速率及孢子产量的影响
将MY-4、ΔGpd1 和Gpd1-c 分别接种到PDA 培养基,观察菌落的颜色、形态等表型。 在PDA 培养基上培养时,前期菌落呈白色,第3 天时颜色慢慢变成绿色,到第7 天时菌落中央呈墨绿色,表层及内部分布大量分生孢子,菌落外围具有乳白色的菌丝,ΔGpd1 突变体菌株的菌落形态与野生型相比无明显差异(图3-a)。

图3 Gpd1 基因缺失对交链格孢菌落形态、生长速率及孢子产量的影响
Fig.3 Effects of Gpd1 gene deletion on colony morphology,growth rate and spore production of Alternaria alternaria
注:图柱上不同小写字母表示显著差异(P <0.05,下同)。
将MY-4、ΔGpd1 和Gpd1-c 各菌株接种到PDA 培养基上培养7 d,每天测量菌落直径以计算生长速率。结果如图3-b 所示,MY-4、ΔGpd1 及Gpd1-c 菌株的生长速率分别为8.54、7.93、8.48 mm/d,ΔGpd1 生长速率较野生型及回补突变体有所降低,且在0.05 水平上达到显著水平。 说明Gpd1 基因参与交链格孢的生长发育调控。
孢子是链格孢中常见的繁殖方式[17]。 将野生型、突变株和回补菌株分别接种于PDA 培养基中,培养7 d 后测定产孢量。 分生孢子产量并没有显著性差异,均在1. 2 × 10⁷ CFU/mL 左右(图3-c),表明Gpd1 敲除并不影响交链格孢的产孢。
2.4 Gpd1 基因缺失对TeA 合成的影响
为探究Gpd1 基因在交链格孢中合成TeA 的能力,将试验菌株同时接种于PDA 培养基中,在相同条件下连续培养7 d,采用超高效液相色谱-串联质谱技术对各菌株中TeA 毒素的产生量进行定量分析。 结果如图4 所示,Gpd1 突变体所产生的TeA 含量与MY-4 及Gpd1-c 相比,未呈现统计学上的显著差异。
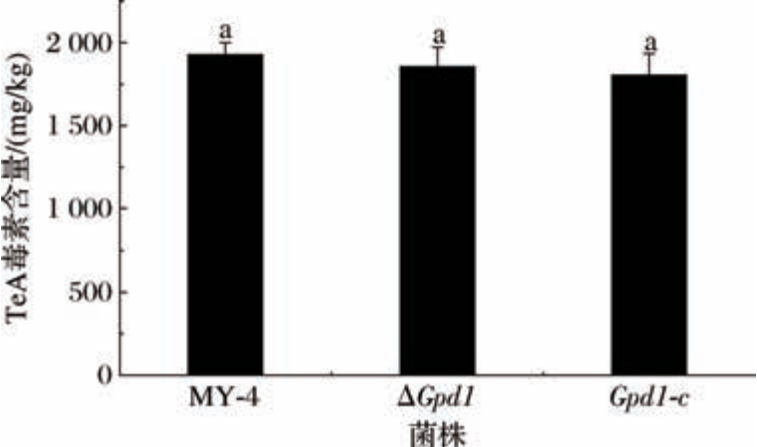
图4 ΔGpd1 对TeA 合成的影响
Fig.4 Effect of ΔGpd1 on TeA synthesis
2.5 Gpd1 基因缺失对TeA 生物合成基因表达的影响
TeA 由异亮氨酸和乙酰乙酰辅酶A 在TeA 合成酶1(TAS1)的催化下合成,且TAS1 属于一类独特的非核糖体肽合成酶和聚酮合酶杂化酶[18]。 对培养6 d 的MY-4、ΔGpd1 及Gpd1-c 菌株进行实时荧光定量(real-time quantitative-pcr,RT-qPCR)分析,结果如图5 所示。 发现Gpd1 缺失菌株中TAS1 基因表达量与野生型差异不显著,说明Gpd1 基因缺失不影响TAS1 基因的表达。
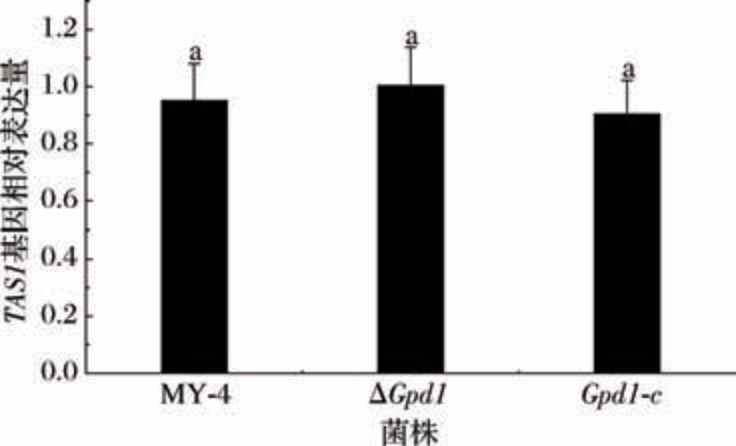
图5 MY-4、ΔGpd1、Gpd1-c 菌株中TAS1 基因表达情况
Fig.5 Expression of TAS1 genes in MY-4,ΔGpd1,and Gpd1-c strains
2.6 Gpd1 基因缺失对胁迫敏感性测定
病原菌在生长及侵染寄主植物的过程中,会遭遇环境因素以及寄主细胞防卫反应所产生的过氧化物等胁迫;而病原菌对这些胁迫的应答机制,与其自身的生长发育及致病能力密切相关[19]。 为探索Gpd1基因是否参与交链格孢对环境胁迫因子的响应,本研究分别考察了ΔGpd1 在细胞膜胁迫(0.01% SDS)、氧化应激胁迫(50 mmol/L H2 O2)、细胞壁胁迫(0.2 g/L 刚果红)和渗透压胁迫(0. 5 mol/L NaCl、0.4 mol/L KCl 和100 mmol/L CaCl2)条件下的生长情况。 在盐胁迫和细胞膜胁迫中,ΔGpd1 的菌落生长抑制率低于野生型MY-4 和回补突变体Gpd1-c,对刚果红的抗性显著增加,而对于氧化应激胁迫来说,ΔGpd1 较野生型和回补突变体未表现显著性差异(图6)。 因此,Gpd1 的缺失会导致交链格孢对细胞膜胁迫和渗透胁迫敏感性下降,对细胞壁的抗性增强。
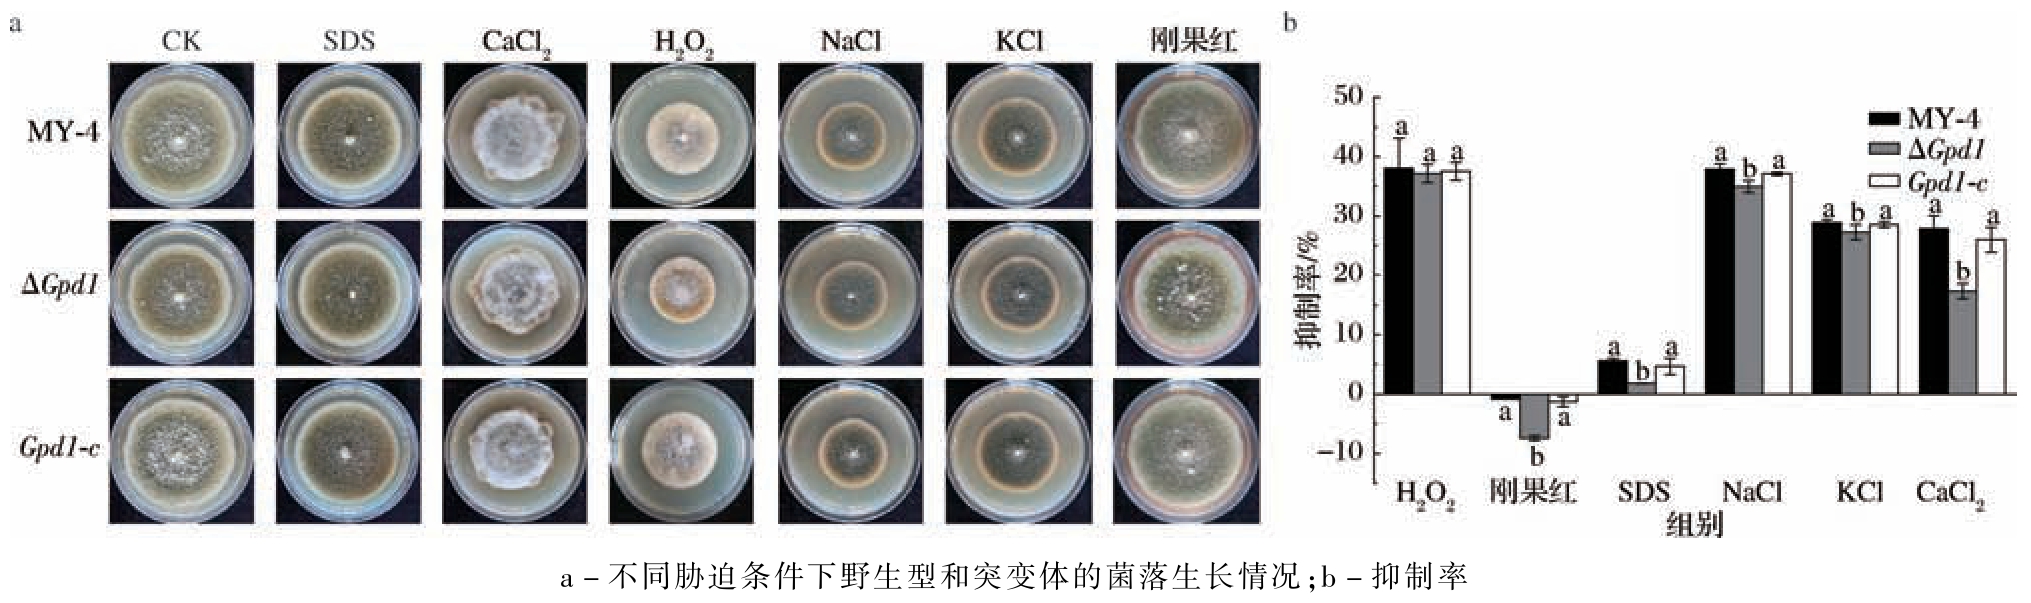
图6 MY-4、ΔGpd1、Gpd1-c 菌株生长胁迫比较
Fig.6 Comparison of growth stress of MY-4, ΔGpd1,and Gpd1-c strains
2.7 Gpd1 基因缺失在番茄上致病性检测
为了分析Gpd1 在交链格孢致病过程中的作用,将野生型菌株MY-4、ΔGpd1、Gpd1-c 在番茄上培养8 d 后进行致病力测定。 MY-4、ΔGpd1 及Gpd1-c 都能形成明显病斑,前期病斑均呈现白色,后期变成绿色。 病斑呈圆形或近圆形,边缘清晰,轻微凹陷。 但ΔGpd1与野生型MY-4 和回补突变体Gpd1-c 形成病斑颜色、形状及大小无异(图7)。
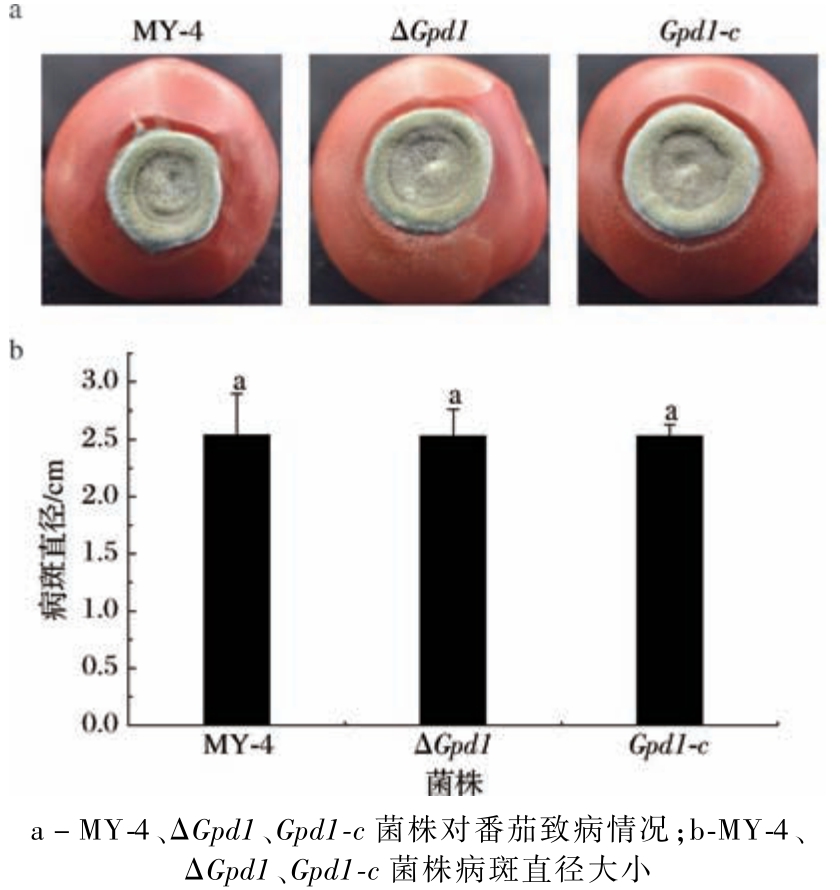
图7 Gpd1 基因缺失对交链格孢致病性的影响
Fig.7 Effect of Gpd1 gene deletion on Alternaria alternata pathogenicity
2.8 Gpd1 基因缺失对黑色素合成的影响
黑色素赋予许多真菌对多种环境因素的抵抗力,因此是在不同条件下生存的重要化合物[20]。 在某些情况下,黑色素已被证明是一种重要的毒力因子[21-22]。 为了考察Gpd1 在交链格孢黑色素合成过程中的作用,将MY-4、ΔGpd1、Gpd1-c 接在PDA 平板上培养7 d,结果如图8 所示。 ΔGpd1 与MY-4、Gpd1-c差异不显著。 综合上述结果可推测,Gpd1 基因对交链格孢黑色素的合成过程无显著影响。
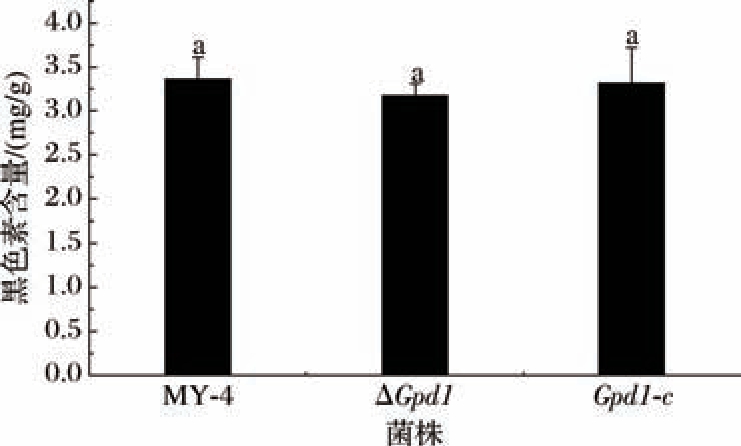
图8 MY-4、ΔGpd1、Gpd1-c 菌株黑色素含量
Fig.8 Melanin content of MY-4, ΔGpd1, and Gpd1-c strains
3 讨论与结论
本研究成功利用同源重组技术敲除了交链格孢中的Gpd1 基因,并对其功能进行了系统性分析。 结果表明,Gpd1 在调控菌丝生长及响应多种逆境胁迫中发挥关键作用,但并不显著影响分生孢子的产生、黑色素合成及病原菌的致病力。
已有研究表明,大丽轮枝菌中Gpd1 同源基因VdGut2 的缺失导致菌丝生长与产孢能力同时受损[10]。 本研究发现交链格孢ΔGpd1 突变体虽在PDA 培养基上生长速率下降,但其分生孢子产量未受显著影响。 该生长缺陷表型与柑橘溃疡病菌(Xanthomonas citri subsp.citri)[23]及构巢曲霉(Aspergillus nidulans)[24]中的报道相一致。 以上结果表明,Gpd1 基因在丝状真菌的营养生长中可能扮演着相对保守的角色,但其对产孢的调控功能则具有物种特异性。
甘油作为细胞响应高渗环境的关键相容性溶质,其生物合成关键酶—甘油-3-磷酸脱氢酶被认为在应激反应中具有重要功能[25]。 酿酒酵母中编码甘油-3-磷酸脱氢酶的Gpd1 基因缺失后,会导致细胞对渗透胁迫呈现超敏反应[8-9]。 然而,在稻瘟病菌(Pyricularia oryzae)的研究中发现,甘油-3-磷酸脱氢酶缺失突变体ΔPoGpd1 和ΔPoGpd2 在含0.8 mol/L NaCl 或1.0 mol/L 山梨醇的高渗培养基中的生长与野生型菌株无明显差异,PoGpd1 与PoGpd2 基因不参与稻瘟病菌的渗透胁迫应答过程[26]。 Fillinger 等[24]对构巢曲霉gfdA 基因(Gpd1 同源基因)的研究显示,其缺失突变体在正常条件下表现出生长缺陷,但该缺陷在高盐胁迫下生长显著恢复,表明gfdA 基因缺失在渗透胁迫下表现出耐受性。 分析表明,这种缺陷可能与甘油-3-磷酸水平下降影响细胞壁完整性有关,而非单纯的甘油合成不足。 本研究发现,在渗透胁迫条件下,Gpd1 敲除菌株的生长抑制率低于野生型,可能是细胞通过上调其他相容性溶质的合成途径(如海藻糖或甘露醇等),有效地补偿了甘油的缺失,从而获得了更强的盐适应能力[27]。
在真菌中,细胞壁作为刚性屏障维持细胞形态并抵抗低渗环境下的膨胀[28]。 刚果红可通过干扰细胞壁成分正确组装的细胞壁结合染料,SDS 作为一种强表面活性剂,能够破坏细胞膜结构并易穿透多孔细胞壁[24]。 已有研究表明,在构巢曲霉、酵母和酿酒酵母中甘油-3-磷酸脱氢酶基因的缺失都会导致细胞壁结构异常[8,24,29]。 本研究中,Gpd1 基因缺失使交链格孢对细胞膜胁迫敏感性下降,对细胞壁的抗性增强。这一现象可能与细胞壁合成或结构被间接改变有关,从而使突变体对刚果红的干扰不敏感甚至修复能力增强。 相应地,对SDS 耐受性的提高也可能源于细胞膜脂质组成的重塑—甘油作为磷脂骨架,其代谢紊乱必然影响膜的生物合成与稳定性[30]。 另外,本研究中,交链格孢菌的Gpd1 基因缺失突变体在氧化胁迫下未表现出生长的显著变化,这表明其功能缺失可被完善的抗氧化系统(如硫氧还蛋白或谷胱甘肽途径等)所补偿,正如在酿酒酵母的增殖过程中观察到Gpd1 表达与氧化应激无直接关联一样[31]。
甘油-3-磷酸脱氢酶基因作为代谢与致病关联的关键候选基因,其功能在不同病原真菌中已展现出显著的致病性调控作用。 柑橘溃疡病菌中,Gpd1 功能具有菌株特异性,仅强毒菌株的Gpd1 缺失会降低对甜橙的致病力,弱毒菌株无明显变化,是强毒菌株实现全毒性的关键[23];西瓜细菌性果斑病菌中,GlpdAc(甘油-3-磷酸脱氢酶同源基因)为致病必需,缺失后对西瓜的致病力完全丧失,且伴随碳代谢缺陷与细胞生理异常[32]。 本研究发现交链格孢Gpd1 缺失感染植物宿主的能力与野生型之间差异不显著,同时也不影响交链格孢产TeA 毒素的能力,这表明Gpd1 基因不是交链格孢寄主番茄上所必需的。
黑色素是一类广泛存在的色素,在众多病原真菌中具有多重生物学功能,且这些功能与真菌的生长发育、环境胁迫应答及致病性均密切相关[33]。 稻瘟病菌中PoGpd1 的缺失会导致多个黑色素合成关键基因(4HNR、AIB1、RSY1 和BUF1)的表达显著下调[26],本研究发现Gpd1 敲除突变体与野生型黑色素差异不显著。 因此,在交链格孢中Gpd1 缺失不影响黑色素的形成。
本研究利用基因敲除技术初步探究了交链格孢Gpd1 的生物学功能,探究了其在菌丝生长、抗胁迫能力、TeA 生物合成和致病性等方面的作用。 结果发现,Gpd1 缺失对交链格孢孢子产量、TeA 产量、对番茄的致病以及黑色素的形成等方面没有显著影响,但会影响生长速率和对胁迫的敏感性。 这些发现为进一步研究植物病原真菌的发病机制和病害防控提供了理论基础。
[1] Apangu G P, Frisk C A, Adams-Groom B, et al. Using qPCR and microscopy to assess the impact of harvesting and weather conditions on the relationship between Alternaria alternata and Alternaria spp.Spores in rural and urban atmospheres[J]. International Journal of Biometeorology, 2023, 67(6):1077 -1093.
[2] 齐丽娟, 李国君, 宁钧宇, 等. 食品中交链孢酚和交链孢酚单甲醚的危害评估[J]. 毒理学杂志, 2024, 38(3):173 -184.Qi L J, Li G J, Ning J Y, et al. Hazard assessment of alternariol and alternariol monomethyl ether in food[J]. Journal of Toxicology,2024, 38(3):173 -184.
[3] Sun F, Fan Y Y, Dai Y Y, et al. Elucidating the occurrence patterns of Alternaria toxin tenuazonic acid in individual tomatoes through MALDI-MSI and LC-MS/MS[J]. Food Chemistry, 2025,488:144912.
[4] Qin Y L, Cheng J X, Liu S X, et al. Selection of novel aptamers specific for tenuazonic acid and their aptasensors[J]. Talanta,2025, 292:127961.
[5] 王霞, 丰东升, 童金蓉, 等. 食品中链格孢霉毒素污染现状及检测技术研究进展[J]. 食品与机械, 2023, 39(5):224 -231.Wang X, Feng D S, Tong J R, et al. Pollution status and research progress on the detection technology of Alternaria mycotoxins in foods[J]. Food & Machinery, 2023, 39(5):224 -231.
[6] Yancey P H. Organic osmolytes as compatible, metabolic and counteracting cytoprotectants in high osmolarity and other stresses[J].The Journal of Experimental Biology, 2005, 208(Pt 15):2819 -2830.
[7] Hohmann S. Osmotic stress signaling and osmoadaptation in yeasts[J]. Microbiology and Molecular Biology Reviews, 2002, 66(2):300 -372.
[8] Ansell R, Granath K, Hohmann S, et al. The two isoenzymes for yeast NAD +- dependent glycerol 3 - phosphate dehydrogenase encoded by GPD1 and GPD2 have distinct roles in osmoadaptation and redox regulation[J]. The EMBO Journal, 1997, 16(9):2179 -2187.
[9] Albertyn J, Hohmann S, Thevelein J M, et al. GPD1, which encodes glycerol-3-phosphate dehydrogenase, is essential for growth under osmotic stress in Saccharomyces cerevisiae, and its expression is regulated by the high-osmolarity glycerol response pathway[J].Molecular and Cellular Biology, 1994, 14(6):4135 -4144.
[10] 刘涛, 秦君, 王春生, 等. 大丽轮枝菌甘油-3-磷酸脱氢酶的功能分析[J]. 菌物学报, 2022, 41(2):248 -259.Liu T, Qin J, Wang C S, et al. Functional analysis of the glycerol-3-phosphate dehydrogenase gene in Verticillium dahliae[J]. Mycosystema, 2022, 41(2):248 -259.
[11] Wei Y D, Shen W Y, Dauk M, et al. Targeted gene disruption of glycerol-3-phosphate dehydrogenase in Colletotrichum gloeosporioides reveals evidence that glycerol is a significant transferred nutrient from host plant to fungal pathogen[J]. Journal of Biological Chemistry, 2004, 279(1):429 -435.
[12] Graf E, Schmidt-Heydt M, Geisen R. HOG MAP kinase regulation of alternariol biosynthesis in Alternaria alternata is important for substrate colonization[J]. International Journal of Food Microbiology, 2012, 157(3):353 -359.
[13] Vikromvarasiri N, Mitsui R, Hirasawa T, et al. Examination of the effect of HOG1 deletion on glucose fermentation in Saccharomyces cerevisiae[J]. Bioresource Technology, 2025, 434:132788.
[14] Liu C, Ding N, Lu P, et al. The effects of swnN gene function of endophytic fungus Alternaria oxytropis OW 7.8 on its swainsonine biosynthesis [ J]. International Journal of Molecular Sciences,2024, 25(19):10310.
[15] Meng J J, Li R J, Huang Q W, et al. Survey and toxigenic abilities of Aspergillus, Fusarium, and Alternaria fungi from wheat and paddy grains in Shanghai, China[J]. Frontiers in Plant Science,2023, 14:1202738.
[16] 曹英姿, 陈雅楠, 汤洁静, 等. 链格孢柑橘致病型过氧化物酶体对接复合体蛋白AaPex13 和AaPex14 的生物学功能[J]. 菌物学报, 2022, 41(8):1199 -1216.Cao Y Z, Chen Y N, Tang J J, et al. Biological functions of the peroxisomal docking proteins, AaPex13 and AaPex14, in the tangerine pathotype of Alternaria alternata[J]. Mycosystema, 2022,41(8):1199 -1216.
[17] Xiao S Y, Wang J H, Bai Z H, et al. Alternaria solani effectors As-CEP19 and AsCEP20 reveal novel functions in pathogenicity and conidiogenesis[J]. Microbiology Spectrum,2024,12(8):e0421423.
[18] Yun C S, Motoyama T, Osada H. Biosynthesis of the mycotoxin tenuazonic acid by a fungal NRPS-PKS hybrid enzyme[J]. Nature Communications, 2015, 6:8758.
[19] 赵冬梅, 侯晓丹, 东曼, 等. AsSod 基因调控茄链格孢致病性及对胁迫的响应[J]. 植物保护, 2022, 48(1):37 -43.Zhao D M, Hou X D, Dong M, et al. AsSod gene regulates the pathogenicity of Alternaria solani and its response to stress[J].Plant Protection, 2022, 48(1):37 -43.
[20] Kumari D, Sachivkina N, Pasrija R. Investigation of the influence of pH and temperature on melanization and survival under oxidative stress in Cryptococcus neoformans[J]. Archives of Microbiology,2024, 206(8):355.
[21] Liporagi-Lopes L C, Chrissian C, Camacho E, et al. Lomentospora prolificans synthesizes several types of melanin [ J]. mSphere,2025, 10(4):e0096324.
[22] Xie L N, Liu Y, Zhang Y J, et al. The divergence of DHN-derived melanin pathways in Metarhizium robertsii[J]. World Journal of Microbiology and Biotechnology, 2024, 40(10):323.
[23] 葛宗灿, 阎依超, 张翠萍, 等. 柑橘溃疡病菌gpd1 基因在致病性中的功能分析[J]. 植物病理学报,2019,49(5):670 -680.Ge Z C, Yan Y C, Zhang C P, et al. Functional analysis of gpd1 gene of Xanthomonas citri subsp. Citri in pathogenesis on Citrus[J]. Acta Phytopathologica Sinica, 2019, 49(5):670 -680.
[24] Fillinger S, Ruijter G, Tamás M J, et al. Molecular and physiological characterization of the NAD-dependent glycerol 3-phosphate dehydrogenase in the filamentous fungus Aspergillus nidulans[J].Molecular Microbiology, 2001, 39(1):145 -157.
[25] Zhang C, Meng X H, Gu H Y, et al. Predicted glycerol 3-phosphate dehydrogenase homologs and the glycerol kinase GlcA coordinately adapt to various carbon sources and osmotic stress in Aspergillus fumigatus[J]. G3, 2018, 8(7):2291 -2299.
[26] Shi Y K, Wang H, Yan Y X, et al. Glycerol-3-phosphate shuttle is involved in development and virulence in the rice blast fungus Pyricularia oryzae[J]. Frontiers in Plant Science, 2018, 9:687.
[27] de Vries R P, Flitter S J, van de Vondervoort P J, et al. Glycerol dehydrogenase, encoded by gldB is essential for osmotolerance in Aspergillus nidulans[J]. Molecular Microbiology, 2003, 49(1):131 -141.
[28] Lu K L, Chen R R, Yang Y, et al. Involvement of the cell wallintegrity pathway in signal recognition, cell-wall biosynthesis, and virulence in Magnaporthe oryzae[J]. Molecular Plant-Microbe Interactions, 2023, 36(10):608 -622.
[29] Rønnow B, Kielland-Brandt M C. GUT2 a gene for mitochondrial glycerol 3-phosphate dehydrogenase of Saccharomyces cerevisiae[J]. Yeast, 1993, 9(10):1121 -1130.
[30] Påhlman A K, Granath K, Ansell R, et al. The yeast glycerol 3-phosphatases Gpp1p and Gpp2p are required for glycerol biosynthesis and differentially involved in the cellular responses to osmotic,anaerobic, and oxidative stress[J]. Journal of Biological Chemistry, 2001, 276(5):3555 -3563.
[31] Pérez-Torrado R, Bruno-Bárcena J M, Matallana E. Monitoring stress-related genes during the process of biomass propagation of Saccharomyces cerevisiae strains used for wine making[J]. Applied and Environmental Microbiology, 2005, 71(11):6831 -6837.
[32] Kim M, Lee J, Heo L, et al. Proteomic and phenotypic analyses of a putative glycerol-3-phosphate dehydrogenase required for virulence in Acidovorax citrulli [ J]. The Plant Pathology Journal,2021, 37(1):36 -46.
[33] Li R, Xu W Y, Zong Y Y, et al. Melanin synthesis gene Aapks contributes to appressorium formation, stress response, cell well integrity and virulence in Alternaria alternata[J]. Postharvest Biology and Technology, 2023, 198:112247.