中枢神经系统中,活性氧(reactive oxygen species,ROS,包括羟自由基、超氧阴离子和H2O2)的过量累积会对脂质、DNA、RNA 及蛋白质等生物大分子造成不可逆的氧化损伤,激活细胞凋亡通路[1-2]。 脑组织代谢率高而抗氧化防御系统相对薄弱,更易受到氧化应激的攻击[3-4]。 小胶质细胞功能紊乱在阿尔茨海默病(Alzheimer’s disease, AD)等神经退行性疾病的病理进程中发挥关键作用,氧化应激会降低小胶质细胞的防御与修复能力,加剧神经炎症与神经损伤[5]。 因此,筛选具有抗氧化与神经保护活性的天然产物,成为此类疾病干预研究的重要方向。
近年来,源于天然产物的生物活性成分因安全性高、多靶点作用等优势,成为神经保护研究的热点[6-7]。 我国特有的红豆杉科榧树属乔木——香榧(Torreya grandis),主要生长在浙江、江西、安徽等亚热带丘陵地区,其种子香榧籽药食同源,含油率高,油脂中富含棕榈酸、硬脂酸、油酸及金松酸(sciadonic acid, SCA)等9 种脂肪酸[8-9]。 其中,SCA 作为香榧油中特有的Δ5-多不饱和脂肪酸,具有减少大鼠肝脏与血清中甘油三酯积累、抗炎、降低血压及预防2 型糖尿病等生物活性[10-12],但其在神经细胞氧化应激损伤中的保护作用尚不明确。
基于此,本研究开展SCA 的体外生物活性研究,通过体外化学抗氧化实验,测定香榧油及不同纯化程度SCA 对DPPH 自由基、·O2- 和·OH 的清除能力,探究其体外抗氧化潜力;同时用H2O2 处理PC12 细胞建立体外氧化损伤模型,模拟神经细胞氧化应激损伤,通过噻唑蓝(methylthiazolyldiphenyl-tetrazolium bromide,MTT)法检测细胞存活率,结合一氧化氮(nitric oxide, NO)等氧化相关指标的测定,初步评价SCA 对氧化损伤神经细胞的保护作用,并进一步采用qPCR 技术检测Nrf2/血红素加氧酶-1(heme oxygenase-1,HO-1)通路下游核心基因(Hmox-1、Nqo-1、Gclc、Gclm 和Slc7a11)的mRNA 表达水平,从转录层面初步探究SCA 发挥神经保护作用的分子机制,为香榧资源的精深加工与高附加值转化奠定实验基础。
1 材料与方法
1.1 实验材料
SCA 从精炼的香榧油经提取得到。 一次纯化SCA 纯度为69.02%,二次纯化SCA 纯度为91.66%。实验所用的PC12 细胞株来源于中国科学院细胞库。
维生素C、DPPH、Tris-盐酸缓冲液、磷酸盐缓冲液,上海源叶生物科技有限公司;RIPA(radio immunoprecipitation assay,RIPA)裂解液,碧云天生物技术有限公司;焦性没食子酸、甲醇、硫酸亚铁(一水合物)、1,10-菲罗啉,上海麦克林生化科技股份有限公司;BCA(bicinchoninic acid,BCA)蛋白浓度测定试剂盒,武汉博士德生物工程有限公司;过氧化氢,上海阿拉丁试剂有限公司;0.1% (体积分数)过氧化氢,国药集团化学试剂有限公司;DMEM 培养基(dulbecco’s modified eagle medium,DMEM)、胎牛血清、0. 25%(体积分数)胰酶、双抗(青霉素、链霉素),赛默飞世尔科技公司;超氧化物歧化酶(superoxide dismutase,SOD)检测试剂盒、丙二醛(malondialdehyde,MDA)检测试剂盒、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)检测试剂盒、一氧化氮(nitric oxide,NO)检测试剂盒,南京建成生物工程研究所;反转录试剂盒、引物、RNA 提取试剂盒,天根物科技有限公司。
1.2 仪器与设备
VIYEE 倒置生物显微镜,天津微仪光学仪器有限公司;RE 2000 旋转蒸发仪,上海昕仪仪器仪表有限公司;Multiskan spectrum 全波段酶标仪,赛默飞世尔科技公司;Agilent 7890A 气相色谱仪,安捷伦科技有限公司;TGL-20B-C 高速离心机,上海安亭有限公司;CFX Connect 荧光定量PCR 仪,Bio-rad;SCG-W 3000 化学发光仪,Servicebio。
1.3 体外抗氧化活性测定
1.3.1 DPPH 自由基清除实验
参考吴秋彤等[13]的方法测定香榧油及不同纯化SCA 的DPPH 自由基清除能力。 将待测样品(香榧油及不同纯化SCA)以无水乙醇溶解并稀释至5、10、15、20、25 mg/mL 5 个浓度,以相同浓度梯度的维生素C 作为对照。 实验设3 个反应组合:空白对照[2 mL 80%(体积分数)甲醇+3 mL 0.5 mmol/L DPPH-甲醇液]、测定管(2 mL 样品液+3 mL 0.5 mmol/L DPPH-甲醇液)、对照管(2 mL 样品液+3 mL 80%甲醇液),所有混合液经涡旋混匀,室温避光孵育30 min,离心5 min,以无水乙醇调零,在517 nm 波长下测定吸光度。 计算DPPH 自由基清除率,按公式(1)计算:
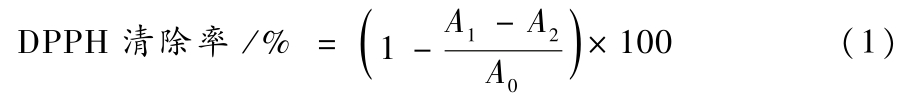
式中:A1,517 nm 下待测液与DPPH 甲醇溶液的吸光度测定值;A2,517 nm 下待测液与甲醇溶液的吸光度测定值;A0,517 nm 下甲醇溶液与DPPH 甲醇溶液的吸光度测定值。
1.3.2 超氧阴离子自由基清除实验
参考吴秋彤等[13]的方法对香榧油及不同纯化SCA 的超氧阴离子自由基清除能力进行测定。 将香榧油和不同纯化SCA 用无水乙醇作为溶剂配制成5、10、15、20、25 mg/mL 5 个浓度。 用相同浓度梯度的维生素C 作为对照。 每个试管预先加入4.5 mL 的50 mmol/L Tris-HCl 缓冲液,于30 ℃水浴15 min。 向空白管中则加入1.0 mL 蒸馏水作为对照,向对照管和测定管中分别加0.4 mL 邻苯三酚(25 mmol/L)和1.0 mL 各浓度样品液。 25 ℃水浴15 min。 加1.0 mL的HCl(10 mmol/L)终止反应。 蒸馏水调零,于325 nm处测定吸光度。 按公式(2)计算:
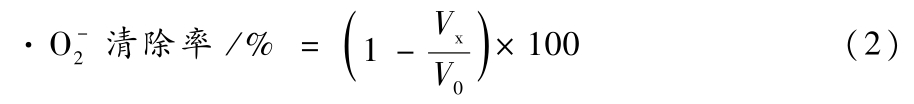
式中:V0,325 nm 处未加待测液所测得的吸光度;Vx,325 nm 处添加待测液后的吸光度变化率。
1.3.3 羟自由基清除实验
参考吴秋彤等[13]的方法对香榧油及不同纯化SCA 的羟自由基清除能力进行测定。 将香榧油及不同纯化SCA 用无水乙醇稀释配制浓度为10、20、30、40、50 mg/mL。 以相同浓度梯度的维生素C 作为对照,各试管预先加2.0 mL 磷酸盐缓冲液(0.2 mol/L)和1.5 mL 邻二氮菲溶液(0. 75 mmol/L)。 对照管:在试管中加4.5 mL 蒸馏水,再加1.0 mL 7.5 mmol/L的硫酸亚铁溶液,最后补充1. 0 mL 0. 1% (体积分数)的过氧化氢溶液。 空白管:在试管中加5. 5 mL蒸馏水,再加1.0 mL 同浓度的硫酸亚铁溶液,混匀。测定管:向试管中加1.0 mL 待测样品溶液和2.0 mL同浓度硫酸亚铁溶液和2.5 mL 蒸馏水,补充0.1%1.0 mL 过氧化氢溶液。 所有试管在30 ℃恒温条件下反应20 min,于510 nm 处记录各样本的吸光度值,以蒸馏水调零。 参照文献方法计算羟自由基的清除能力,按公式(3)计算:
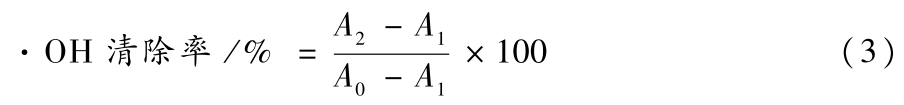
式中:A0,510 nm FeSO4、缓冲液和邻二氮菲的吸光度值;A1,510 nm FeSO4、缓冲液、邻二氮菲和H2 O2 的吸光度值;A2,510 nm FeSO4、待测液、H2 O2、邻二氮菲、样品和缓冲液的吸光度值。
1.4 PC12 细胞氧化损伤模型及金松酸的保护作用
1.4.1 PC12 细胞培养
PC12 细胞培养体系:高糖DMEM 培养基+10%(体积分数)胎牛血清+1%(体积分数)青霉素-链霉素,置于37 ℃、5% CO2 恒温培养箱中,以贴壁形态生长。细胞复苏、传代以及冻存等操作均遵循常规标准方法。
1.4.2 MTT 法检测细胞活力
将处于指数生长期的PC12 细胞以每孔1 ×10⁵个的密度分布于96 孔板内,待其贴壁24 h 后加入药物干预24 h。 处理完毕后弃去旧培养基,每孔加入100 μL 配制好的MTT 试剂(使用含1%青霉素-链霉素的高糖DMEM 溶解,MTT 浓度为1 mg/mL),在培养箱内继续孵育4 h;弃去孔内废液,添加150 μL DMSO,缓慢摇动10 min 使甲臜结晶完全溶解。 采用酶标仪在490 nm 波长下测定各孔吸光度,细胞存活率按公式(4)计算:
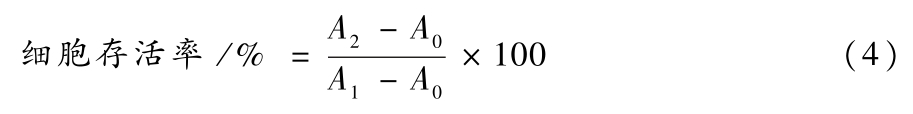
式中:A0,空白组(仅含培养基和MTT,无细胞)的OD值;A1,对照组(含细胞、未经药物处理)的OD 值;A2,药物处理组的OD 值。
1.4.3 金松酸浓度筛选及毒性评估
将对数生长期的PC12 细胞悬液以1 ×10⁵个/孔的密度接种至96 孔培养板(100 μL/孔),在恒温培养箱中培养24 h;吸除原有培养液,对照组每孔加入100 μL 完全培养基,样品组每孔加入100 μL 用完全培养基稀释的不同浓度SCA 溶液(100、200、300、400、500、600、700、800、1 000 μg/mL);继续培养PC12 细胞24 h 后,采用MTT 法测定不同浓度SCA处理组的细胞存活情况,以评估SCA 对PC12 细胞产生毒性作用的浓度范围。
1.4.4 H2O2 诱导PC12细胞损伤模型的建立
将PC12 细胞按每孔1×10⁵个的密度加入96 孔板内,贴壁培养48 h(其中前24 h 培养后需吸除原培养基,更换新完全培养基继续培养);对照组每孔加入100 μL 完全培养基,H2 O2 损伤组则分别加入100 μL用完全培养基稀释的H2O2溶液(50、70、90、110、130、150、170、190、210 μmol/L),继续在恒温培养箱培养2 h;实验处理完毕后,利用MTT 法检测细胞存活率,以确定后续氧化损伤造模所用的H2O2浓度。
1.4.5 金松酸对H2O2 诱导PC12 细胞损伤的保护作用
收集对数生长期的PC12 细胞,用培养液稀释后以每孔1 ×10⁵ 个的密度接种至96 孔板,贴壁培养24 h 后,吸掉孔内废液。 对照组:加入100 μL 完全培养基,孵育24 h,移除旧培养基,再加100 μL 完全培养基置于恒温继续孵育2 h。 样品组:加入100 μL含SCA 的完全培养基培养24 h,再加入100 μL 浓度为150 μmol/L 的H2O2,继续培养2 h。 H2O2损伤处理组:加入100 μL 完全培养基培养24 h,吸去培养液,加入100 μL 150 μmol/L 的H2 O2 继续培养2 h。 为便于后续表述,将未经H2O2 处理的正常细胞设为对照组(C 组),将仅接受150 μmol/L H2O2 处理而未加SCA的细胞设为损伤模型组(M 组)。 所有处理结束后,用MTT 法检测各组的细胞存活率,以明确SCA 在对抗H2O2 诱发的PC12 细胞氧化损伤中所发挥的保护作用。
1.4.6 不同浓度金松酸对H2O2 诱导PC12 细胞因子的影响
将对数生长期的PC12 细胞悬液调整浓度后,按每孔1 ×10⁵ 个的细胞量铺板于96 孔板中,培养24 h 后,吸去废液。 对照组:给予100 μL 完全培养基孵育24 h后,吸去废液,加入100 μL 完全培养基置于恒温继续孵育2 h。 H2O2损伤处理组:加入100 μL 完全培养基培养24 h,吸去培养液,加入100 μL 150 μmol/L 的H2O2 继续孵育2 h。 样品处理组:加入100 μL 含SCA 的完全培养基(100、200、300、400 μg/mL)孵育24 h 后,更换为100 μL 150 μmol/L 的H2O2。 所有处理结束后,按照GSH-Px、MDA、SOD 和NO 试剂盒提供的方法收集各处理组细胞和测定其含量,并依据BCA 蛋白定量检测试剂盒的标准步骤测定样本中的蛋白浓度。
1.5 金松酸处理H2O2 诱导PC12 细胞的qPCR 基因表达检测
1.5.1 PC12 细胞总RNA 的提取
向收集到的细胞中加入裂解液,涡旋振荡混匀。匀浆液于4 ℃、12 000 r/min 离心5 min,将上清液转移至基因组DNA 去除柱,4 ℃、12 000 r/min 离心5 min,保留滤液。 向滤液中加入等体积的70%(体积分数)乙醇,混匀,将溶液(及可能出现的沉淀)全部转入RNase-Free 吸附柱CR4,12 000 r/min 离心5 min,弃去收集管中的废液。 向吸附柱CR4 中加入500 μL去蛋白液,室温静置3 min 后于4 ℃、12 000 r/min 离心10 min,弃废液。 向吸附柱中加入550 μL 漂洗液RW,室温静置2 min,12 000 r/min 离心5 min,弃废液;重复该漂洗步骤1 次。 随后于12 000 r/min 空柱离心2 min,弃废液。 将RNase-Free 吸附柱CR4 置于室温放置2 min,彻底晾干吸附材料中残余的漂洗液。将吸附柱转入一个新的RNase-Free 离心管中,向吸附膜中央悬空滴加30 ~100 μL RNase-Free ddH2O,室温放置2 min,12 000 r/min 离心2 min,即得RNA 溶液。 使用NanoDrop 2000 超微量分光光度计检测RNA 浓度与纯度:先用RNase-free 水进行空白校正,再取2.5 μL RNA 样品点样,通过配套软件读取A260/A280及A260/A280 值以评估纯度,并记录浓度。 浓度过高的样本,用RNase-free 水适当稀释,调整至终浓度200 ng/μL,用于后续分子生物学实验。
1.5.2 反转录
按Vazyme 试剂盒说明书操作,总RNA 10 μL,无核糖核酸酶水补充至20 μL,反应条件:25 ℃5 min,42 ℃30 min,85 ℃5 s。
1.5.3 引物设计
首先从NCBI 数据库获取目的基因的mRNA 转录本序列,再利用Primer Premier 6.0 软件完成引物设计,最终交由生工生物工程(上海)股份有限公司进行合成。
1.5.4 引物序列
见表1。
表1 脑组织qPCR 引物序列
Table 1 qPCR Primer Sequences for Brain Tissue
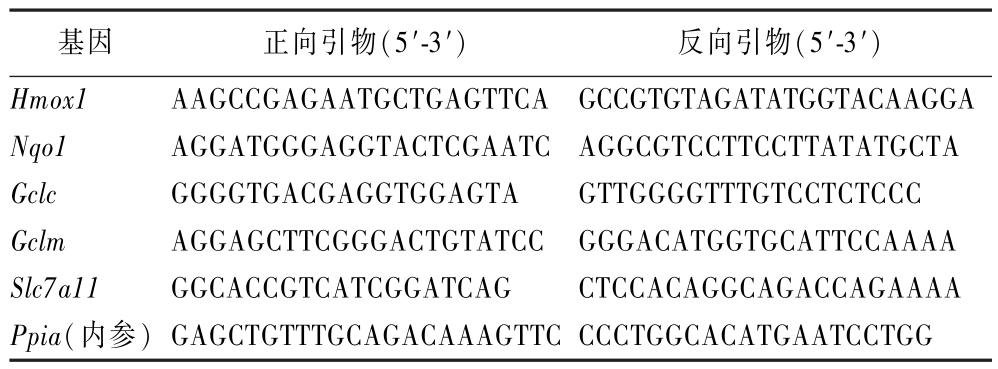
基因正向引物(5′-3′)反向引物(5′-3′)Hmox1AAGCCGAGAATGCTGAGTTCA GCCGTGTAGATATGGTACAAGGA Nqo1AGGATGGGAGGTACTCGAATC AGGCGTCCTTCCTTATATGCTA GclcGGGGTGACGAGGTGGAGTAGTTGGGGTTTGTCCTCTCCC GclmAGGAGCTTCGGGACTGTATCC GGGACATGGTGCATTCCAAAA Slc7a11GGCACCGTCATCGGATCAGCTCCACAGGCAGACCAGAAAA Ppia(内参) GAGCTGTTTGCAGACAAAGTTC CCCTGGCACATGAATCCTGG
1.6 统计学分析
本研究数据以“平均值± 标准差”呈现。 使用SPSS Statistics 27.0.1 软件和Prism 8 软件完成统计处理。 对于多个实验组之间的整体均数比较,首先采用单因素方差分析(One-way ANOVA),再采用Duncan检验或Tukey 的事后检验进行两两比较,P <0.05 或P <0.01 视为具有统计学差异。
2 结果与分析
2.1 香榧油及不同纯化金松酸的体外自由基清除能力
图1 展示了香榧油、一次纯化SCA 及二次纯化SCA 对DPPH 自由基、超氧阴离子自由基(· )和羟自由基(·OH)的清除作用。 各样品清除率均随施加浓度的递增而升高,但活性差异显著。 在DPPH自由基清除实验(图1-A)中,维生素C 作为阳性对照,其清除率在5 ~25 mg/mL 范围内稳定维持在95%以上。 香榧油的清除能力随浓度升高仅缓慢上升,在25 mg/mL 时清除率为50. 28%。 一次纯化SCA 和二次纯化SCA 的活性均优于香榧油,且二次纯化SCA 在各浓度下均高于一次纯化SCA,于25 mg/mL 时清除率达93.99%,接近维生素C 水平。在超氧阴离子自由基清除实验(图1-B)中,维生素C的清除率同样稳定在95%左右。 二次纯化SCA 清除能力最强,在25 mg/mL 时清除率达87.45%,明显高于一次纯化SCA(58. 72%)和香榧油(46. 51%),且在低浓度下即表现出较强活性。 在羟自由基清除实验(图1-C)中,维生素C 在10 ~50 mg/mL 浓度范围内清除率稳定于95% 左右。 香榧油的清除能力最弱,50 mg/mL 时仅约40%。 一次纯化SCA 在低浓度时活性接近于零,随浓度升高呈剂量依赖性增长,50 mg/mL 时清除率达62.11%。 二次纯化SCA 的活性同样明显优于一次纯化SCA,50 mg/mL 时清除率高达92.33%,接近维生素C 的效果。
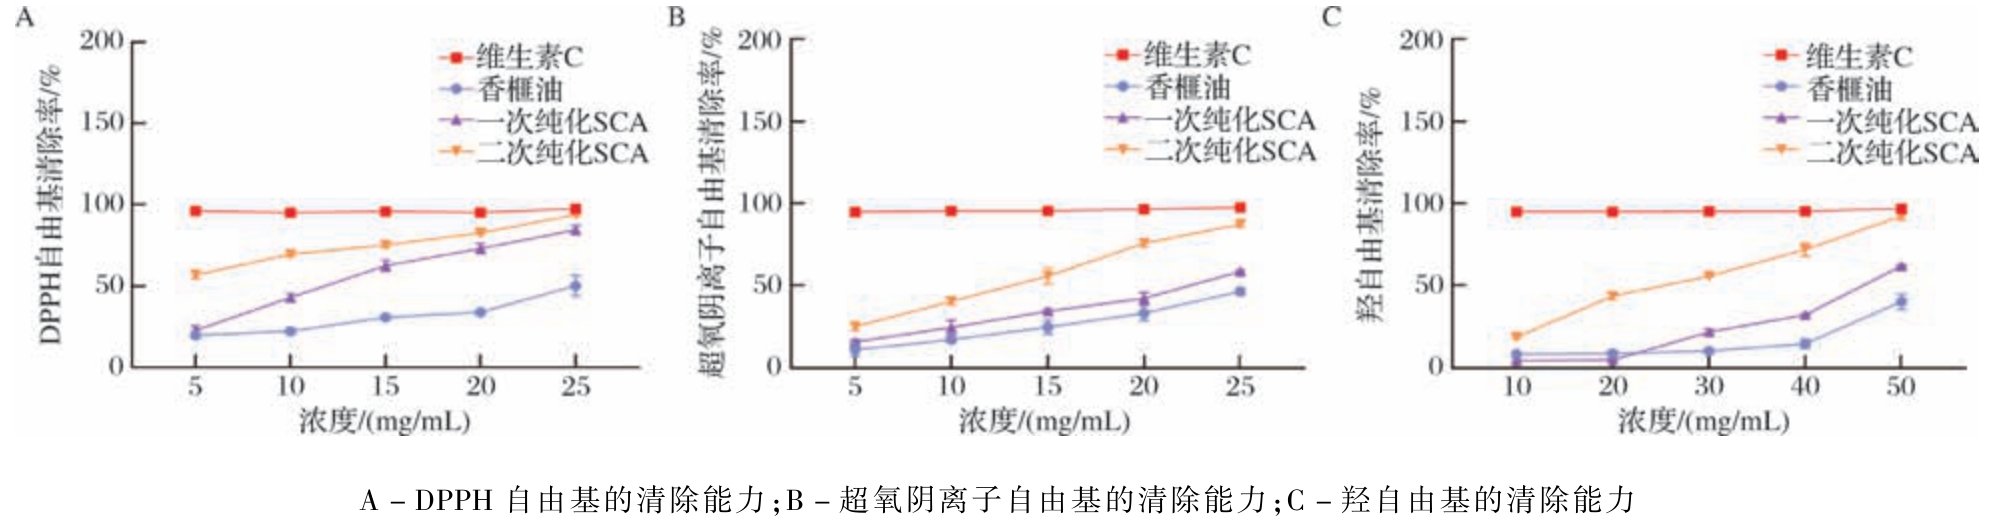
图1 香榧油及不同纯化SCA 对3 种自由基的清除能力
Fig.1 Scavenging activity of Torreya grandis seed oil and variously purified SCA against three types of free radicals
2.2 金松酸对H2O2 诱导PC12 细胞氧化损伤的保护作用
为了探究SCA 的神经保护潜力,本研究首先通过细胞毒性试验评估其对PC12 细胞的直接作用(图2-A)。 结果显示,SCA 在100 ~500 μg/mL 浓度范围内能促进PC12 细胞活力的提升,其中100 μg/mL 时细胞存活率达113.48%(P <0.01),且在0 ~700 μg/mL 区间未呈现明显毒性。 然而,当浓度升至800 μg/mL 及以上时,细胞存活率下降至89.51%(P <0.01),表明高浓度SCA 对细胞有毒性作用。 基于此,后续实验选用0 ~700 μg/mL 的安全浓度范围。 随后,通过H2O2处理构建PC12 细胞氧化损伤模型(图2-B),结果表明,150 μmol/L 的H2O2 可使细胞存活率降至约51.46%,接近半致死率,因此选定该浓度用于后续保护性实验。
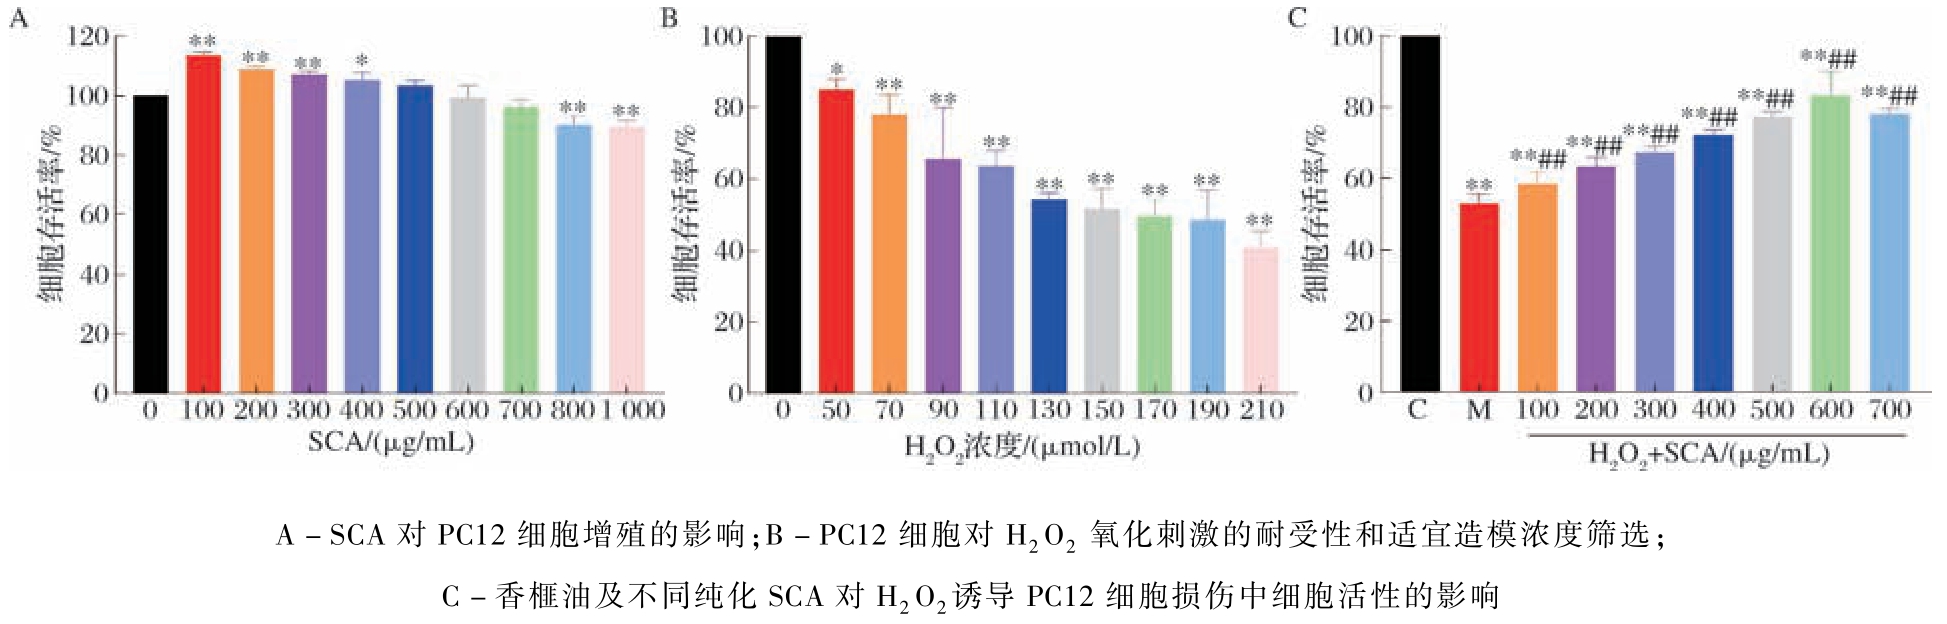
图2 SCA 对H2 O2 诱导PC12 细胞氧化损伤的保护作用
Fig.2 Protective effect of SCA on H2 O2-induced oxidative damage in PC12 cells
注:与对照组相比,*P <0.05,**P <0.01;与M 组比较,#P <0.05,##P <0.01。
在H2O2 诱导的氧化损伤模型中,SCA 表现出浓度依赖性的细胞保护作用(图2-C)。 与仅用H2O2 处理的损伤组(存活率约52.77%)相比,100 ~700 μg/mL的SCA 与H2O2 共处理均能剂量依赖性地抑制细胞活力的下降(P <0.01)。 其中,600 μg/mL 的SCA 保护效果最佳,使细胞存活率恢复至约83. 14%,较损伤组提高了约30.37 个百分点。 综上所述,SCA 在无毒浓度范围内不仅能维持PC12 细胞的正常活力,还能有效拮抗H2O2 诱导的氧化损伤,显示出明确的神经保护活性。
2.3 金松酸对H2O2 诱导PC12 细胞氧化应激指标的调控作用
为明确SCA 对H2O2 所致PC12 细胞氧化应激的干预效果,本研究检测了NO、GSH-Px、MDA 和SOD的水平变化(图3)。 与C 组相比,H2O2 模型组的NO和MDA 含量增加(P <0.01),而GSH-Px 和SOD 活性则降低(P <0.01),表明氧化应激模型建立成功。经100 ~400 μg/mL SCA 干预后,细胞内的NO 与MDA 水平随剂量增加而逐步降低,其中400 μg/mL SCA 处理组的NO 含量较模型组降低(P <0. 01),MDA 含量亦呈下降趋势。 与此同时,SCA 处理可提升GSH-Px 和SOD 的活性(P <0.05),且这种提升作用同样呈现浓度依赖性,400 μg/mL SCA 处理组的GSH-Px 活性恢复至接近对照组水平。 综上所述,SCA 可通过抑制NO 和MDA 的过度生成,同时增强GSH-Px 和SOD 等抗氧化酶的活性,有效缓解H2O2对PC12 细胞造成的氧化损害,其神经保护作用可能与调控氧化-抗氧化平衡有关。
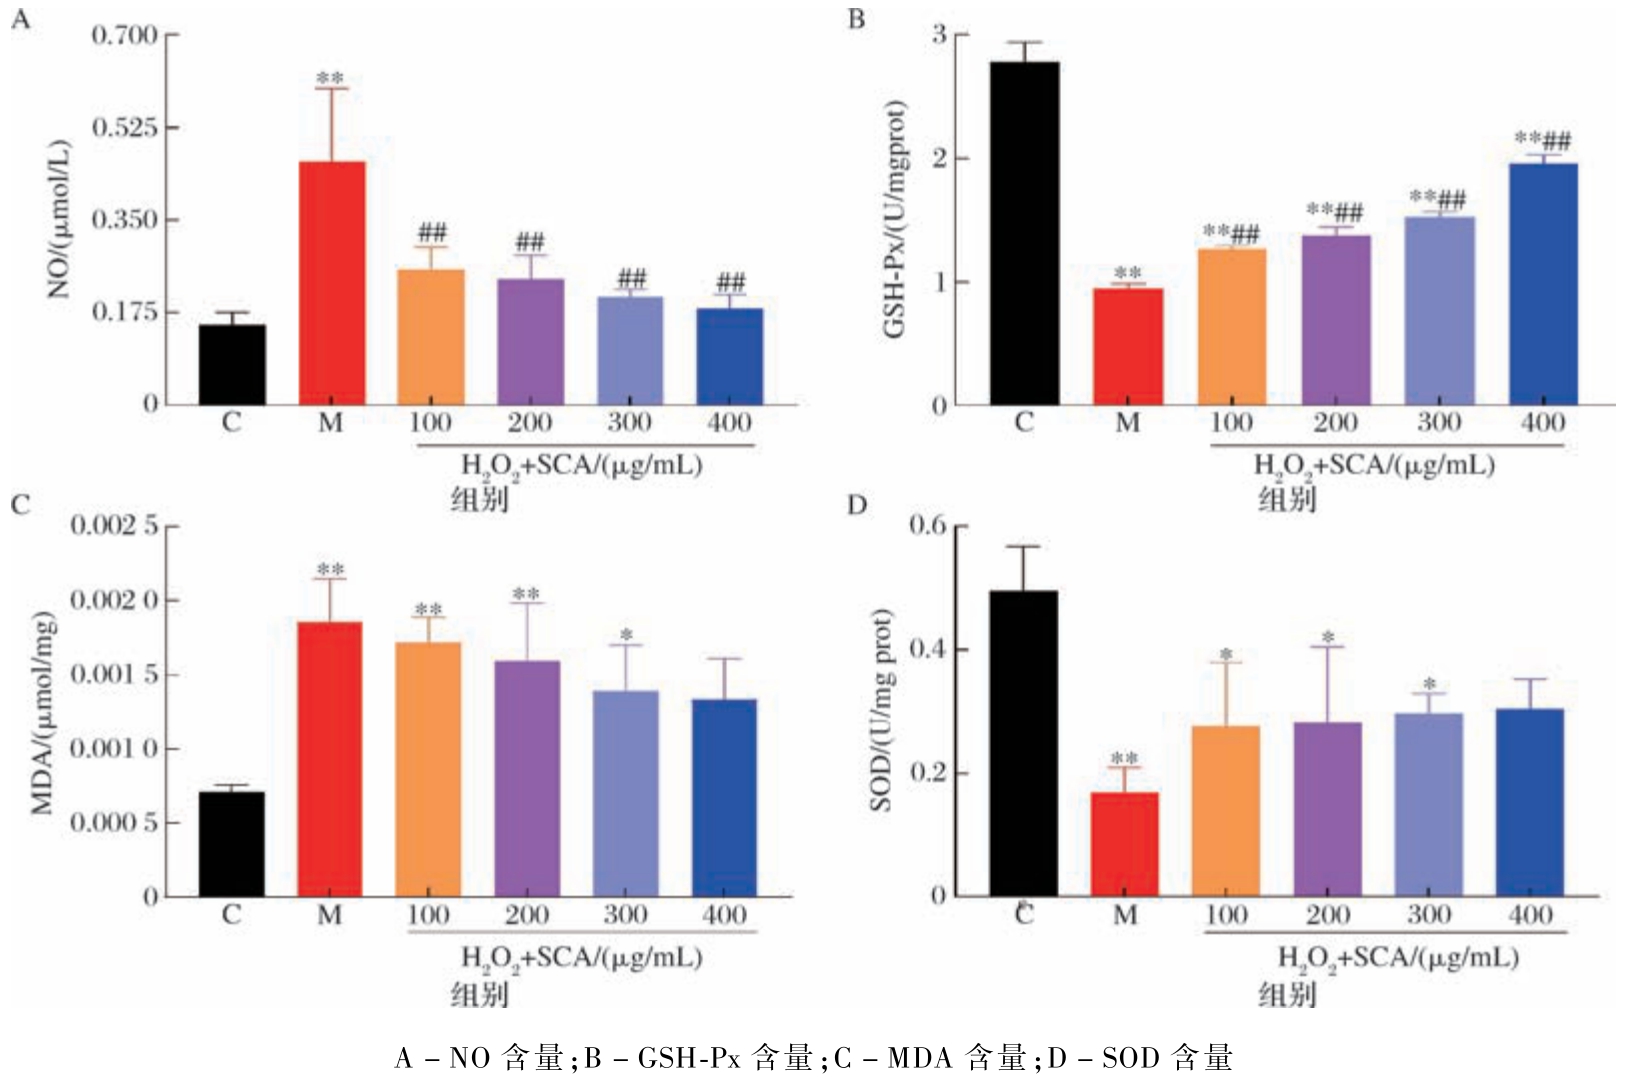
图3 香榧油及不同纯化SCA 对H2 O2 诱导PC12 细胞氧化因子含量的影响
Fig.3 Effects of Torreya grandis oil and differently purified SCA on the contents of oxidative factors in H2 O2-induced PC12 cells
注:与C 组比较,*P <0.05,**P <0.01;与M 组比较,#P <0.05,##P <0.01(下同)。
2.4 金松酸对H2O2 诱导PC12 细胞基因表达的影响
先前研究表明,Aβ 沉积可诱导神经元内ROS 大量累积,破坏氧化还原稳态,进而引发突触功能障碍与认知衰退,是AD 发病的核心病理机制之一。 Nrf2作为改善细胞抗氧化应答的关键转录因子,目前被认为是缓解AD 相关氧化损伤的重要分子靶点。 在生理状态下,Nrf2 可被激活并转位至细胞核,与小Maf蛋白形成异二聚体,结合到抗氧化反应元件(antioxidant response element,ARE)上,从而启动下游基因如HO-1、NAD(P)H ∶醌氧化还原酶1(NAD(P)H:quinone oxidoreductase 1,NQO1)、谷氨酸-半胱氨酸连接酶催化亚基(glutamate-cysteine ligase catalytic subunit,GCLC) 及调节亚基(glutamate-cysteine ligase modifier subunit, GCLM) 等的转录; 其中, GCLC/GCLM 共同构成GSH-Px 合成的复合物,而Slc7a11通过介导胱氨酸摄取维持细胞内GSH 水平,因此Nrf2/HO-1/NQO1 与GSH-Px 合成构成本研究关注的核心抗氧化通路。
为明确SCA 调控该通路的作用机制,本研究以H2O2 诱导的PC12 细胞氧化损伤为模型,检测了上述核心基因的mRNA 表达量,结果见图4 所示。 与C组相比,M 组中所有检测的Nrf2 下游靶基因的mRNA 水平均出现下调:Hmox-1、Nqo-1、Gclc 和Slc7a11的降低具有统计学意义(P <0.01),Gclm 同样低于C组(P <0.05),表明氧化应激模型构建成功,Nrf2 通路整体转录活性受到抑制。 与M 组相比,SCA 干预呈现浓度依赖性的恢复趋势,且各基因的响应特征存在差异。 其中,Hmox-1 仅在400 μg/mL SCA 处理时出现回升(P <0.01),恢复至C 组水平,100 ~300 μg/mL 剂量组未见明显变化。 Nqo-1 在300 和400 μg/mL 浓度下被上调(P <0. 01),恢复至正常水平,100、200 μg/mL 剂量组变化无统计学差异。 Gclc 对SCA的响应最为敏感,100 μg/mL 即可观察到表达回升(P <0.05),200 ~400 μg/mL 剂量组的上调更为明显(P <0. 01),仅400 μg/mL 组恢复至正常水平。Gclm 在M 组中低于C 组(P <0.05),但各浓度SCA处理均未使其表达出现统计学意义的变化(P >0.05),数值上可见一定回升趋势。 Slc7a11 在200、300 μg/mL SCA 处理时表达回升(P <0. 05),400 μg/mL 时上调进一步增加(P <0.01),这3 个剂量组均恢复至正常水平,仅100 μg/mL 无明显变化。综上所述,在PC12 细胞氧化应激模型中,SCA 可通过多靶点、剂量依赖性的方式激活Nrf2 下游抗氧化信号,其中Gclc 响应最敏感、低剂量即可起效,其次是Slc7a11,而Hmox-1 和Nqo1 仅在高剂量下被显著上调,多基因共同作用全面恢复氧化损伤细胞的抗氧化防御能力,从而发挥细胞保护作用。

图4 SCA 对H2 O2 诱导PC12 细胞基因表达的影响
Fig.4 Effects of SCA on gene expression in H2 O2-induced PC12 cells
3 讨论
氧化应激在神经退行性疾病的发病机制中发挥着决定性作用。 过量活性氧可攻击蛋白质、脂质和DNA,引起细胞生理功能受损并诱导凋亡。 H2O2 作为一种重要的活性氧,能自由穿透细胞膜并在细胞内转化为高活性羟自由基,常被用来构建神经细胞氧化损伤的模型。 PC12 细胞源自大鼠肾上腺嗜铬细胞瘤,具有交感神经元样特性,是研究神经保护活性的经典模型。 本研究以PC12 细胞为对象,证实SCA 对H2O2 诱导的细胞氧化损伤具有显著保护作用。
SCA 作为Δ5-聚亚甲基间隔型多不饱和脂肪酸,其双键位于脂肪酸碳链的Δ5 位,与常见的Δ9-不饱和脂肪酸(如油酸)及Δ9,12-共轭多不饱和脂肪酸(如α-亚麻酸)在双键排列上存在本质区别。 该独特结构赋予了SCA 较强的自由基清除能力-Δ5 位双键更靠近羧基端,影响分子整体电子云分布,使烯丙基氢原子更易均裂以提供氢原子,从而增强对自由基的直接猝灭能力;同时聚亚甲基间隔型排列避免了共轭双键体系的形成,降低了脂肪酸分子在发挥抗氧化作用时的自氧化敏感性。 Suzuki 等[14]通过动力学研究发现,不饱和脂肪酸与羟自由基的反应速率常数可达6.5 ×10⁹ M-1·s-1,这为SCA 的自由基清除能力提供了理论基础。 Zhou 等[15]研究表明,富含SCA 的香榧仁油经分馏后与未分馏油具有相当的稳定性和自由基清除能力。 蒋起宏等[16]证实香榧油可通过调节AMPKα/SREBP-1c 信号通路改善脂质代谢紊乱,提高机体抗氧化水平。 此外,香榧油还被发现可缓解东莨菪碱诱导的小鼠认知障碍,其机制与减轻氧化应激有关[17]。
本研究在细胞和分子水平上都看到了比较一致的保护效果。 SCA 处理后,被H2O2 损伤的PC12 细胞存活率从51.46%回升到83.14%,SOD 和GSH-Px的活性明显升高,NO 和MDA 的含量则降了下来。有意思的是,GSH-Px 的活性在400 μg/mL 时就差不多恢复到了正常对照的水平,而MDA 虽然也呈剂量依赖性下降,但没有达到统计学上的显著差异。 这有点像SCA 优先保护了酶类的抗氧化系统,而不是先去打断脂质过氧化的链式反应。 类似的现象在别的天然产物里也见过:Sun 等[18]研究发现,黑胡椒来源的α-亚麻酸可通过靶向PGK1 激活Nrf2 通路保护PC12 细胞;刘娅等[19]证实燕窝O-链寡糖可在H2O2刺激的PC12 细胞中发挥抗氧化防护作用;Chen等[20]研究也表明原花青素可通过上调Nrf2/ARE 通路保护PC12 细胞;杨文建等[21]报道了金针菇来源的黄酮类化合物可减轻H2O2 对PC12 细胞造成的损伤,其机制同样涉及增强抗氧化酶活性。 上述研究表明激活Nrf2 通路、增强内源性抗氧化酶系统是多种天然产物发挥神经保护作用的共性机制,SCA 作为小分子脂肪酸,在跨膜转运上可能比多糖或多酚类有它自己的特点。 再看分子机制,用qPCR 检测后发现,SCA 对Nrf2 下游那几个靶基因的激活并不是同步的,而是有明显的层次性。 Gclc 最敏感,100 μg/mL 就开始回升了;Slc7a11 次之,200 μg/mL 起效;Hmox-1 和Nqo-1 则需要到300 ~400 μg/mL 的中高剂量才被显著上调;Gclm 虽然数值上有回升趋势,但没有统计差异。 这种差异可能意味着SCA 优先保障GSH 合成的原料供应和限速步骤(Gclc 和Slc7a11),这就跟GSH-Px 活性较早恢复能对上;而HO-1 和NQO1 更像是第二道防线,在高剂量时才被调动起来。 值得一提的是,玛依乐·艾海提等[22]也报道过另一种长链不饱和脂肪酸——神经酸,同样可以通过激活Nrf2/HO-1 通路保护PC12 细胞。 SCA 和神经酸结构上有相似之处,但SCA 对下游靶基因的激活方式更具选择性。 综合来看,SCA 一方面靠Δ5 结构直接清除自由基,另一方面通过差异性地激活Nrf2 通路,让细胞从多个层次恢复抗氧化能力。
综上所述,SCA 具有良好的体外抗氧化活性和神经保护作用,其机制涉及Δ5-多不饱和脂肪酸结构介导的直接自由基清除、SOD 和GSH-Px 等抗氧化酶活力的恢复、脂质过氧化的抑制及NO 代谢的调控,并通过差异性激活Nrf2/HO-1 信号通路下游靶基因实现多层次的细胞保护。 本研究为香榧资源的精深加工及神经保护类天然产物的开发提供了实验依据。
4 结论
本研究从体外化学抗氧化与细胞氧化损伤保护2 个层面,结合分子生物学检测,系统评估了SCA 的抗氧化活性及神经保护作用。 主要结论如下:a)高纯度SCA(91.66%)对DPPH 自由基、·O2- 和·OH的清除能力接近维生素C 水平,显著优于香榧油和低纯度SCA(69.02%)。 b)在H2O2 诱导的PC12 细胞氧化损伤模型中,SCA 在0 ~700 μg/mL 范围内无细胞毒性,600 μg/mL 干预可使细胞存活率从51.46%恢复至83.14%,同时降低NO 和MDA 含量,提升SOD 和GSH-Px 活性。 c)qPCR 分析表明,SCA(100 ~400 μg/mL)可剂量依赖性地恢复Nrf2 通路下游多个靶基因的表达,但各基因的响应阈值存在差异:Gclc 最为敏感(100 μg/mL 起效),Slc7a11 次之(200 μg/mL 起效),Hmox-1 和Nqo-1 仅在中高剂量(300 ~400 μg/mL)下被激活,Gclm 变化未达统计学显著水平。 综上,SCA 是一种具有开发前景的天然神经保护候选物,本研究为香榧资源的高值化利用提供了实验依据。
[1] Ebding J, Mazzone F, Kins S, et al. How neurons cope with oxidative stress[J]. Biological Chemistry, 2025, 406(5 -7):219 -228.
[2] 刘阳, 季文赛, 董冰, 等. 纳米酶在活性氧相关脑部疾病中的应用现状[J]. 临床神经外科杂志, 2024, 21 (3):341 -344; 348.Liu Y, Ji W S, Dong B, et al. Application status of nanozymes in reactive oxygen species related brain diseases[J]. Journal of Clinical Neurosurgery, 2024, 21(3):341 -344; 348.
[3] Salvagno M, Sterchele E D, Zaccarelli M, et al. Oxidative stress and cerebral vascular tone:The role of reactive oxygen and nitrogen species[J]. International Journal of Molecular Sciences, 2024, 25(5):3007.
[4] Garbarino V R, Orr M E, Rodriguez K A, et al. Mechanisms of oxidative stress resistance in the brain:Lessons learned from hypoxia tolerant extremophilic vertebrates[J]. Archives of Biochemistry and Biophysics, 2015, 576:8 -16.
[5] Asveda T, Talwar P, Ravanan P. Exploring microglia and their phenomenal concatenation of stress responses in neurodegenerative disorders[J]. Life Sciences, 2023, 328:121920.
[6] Zhang X Y, Huang S J, Xu H F, et al. Research progress on plantderived natural compounds regulating the MAPK signaling pathway for the prevention and therapy of Alzheimer’s disease[J]. Frontiers in Pharmacology, 2025, 16:1666082.
[7] Aktary N, Jeong Y, Oh S, et al. Unveiling the therapeutic potential of natural products in Alzheimer’s disease:Insights from in vitro, in vivo, and clinical studies[J]. Frontiers in Pharmacology, 2025,16:1601712.
[8] 蒋起宏, 卢红伶, 姚诗炜, 等. 不同香榧品种果实特性比较及脂肪酸组成分析[J]. 浙江农业科学, 2023(4):945 -948.Jiang Q H, Lu H L, Yao S W, et al. Comparison of fruit characteristics and fatty acid composition of different Torreya grandis varieties[J]. Journal of Zhejiang Agricultural Sciences,2023(4):945 -948.
[9] 陶涛, 刘耀辉, 薛中俊, 等. 7 株香榧优株坚果表型性状与品质特性的研究[J]. 南京林业大学学报(自然科学版), 2024, 48(2):37 -44.Tao T, Liu Y H, Xue Z J, et al. Studies on the phenotypic traits and quality characteristics of seven superior tree nuts of Torreya grandis ‘Merrillii’ [J]. Journal of Nanjing Forestry University(Natural Sciences Edition), 2024, 48(2):37 -44.
[10] Pédrono F, Boulier-Monthéan N, Boissel F, et al. Sciadonic acid derived from pine nuts as a food component to reduce plasma triglycerides by inhibiting the rat hepatic Δ9-desaturase[J]. Scientific Reports, 2020, 10:6223.
[11] 杨兴文, 姚诗炜, 卢红伶, 等. 金松酸对高脂饮食诱导的肥胖小鼠肝脏脂质代谢的影响[J]. 食品工业科技, 2024, 45(6):304 -312.Yang X W, Yao S W, Lu H L, et al. Effect of sciadonic acid on hepatic lipid metabolism in obese mice induced by a high-fat diet[J].Science and Technology of Food Industry,2024,45(6):304-312.
[12] Chen L, Jiang Q H, Jiang C K, et al. Sciadonic acid attenuates high-fat diet-induced obesity in mice with alterations in the gut microbiota[J]. Food & Function, 2023, 14(6):2870 -2880.
[13] 吴秋彤, 孟鑫, 王美丽, 等. 3 种植物油脂体外抗氧化及降血脂活性分析[J]. 食品与机械, 2025, 41(10):121 -125.Wu Q T, Meng X, Wang M L, et al. Antioxidation and hypolipidemia functions of three oils in vitro[J]. Food & Machinery,2025, 41(10):121 -125.
[14] Suzuki M, Numadate N, Enami S. Reaction of sapienic acid with hydroxyl radical in water:A kinetic and product study[J]. The Journal of Physical Chemistry. A, 2025, 129(39):9052 -9061.
[15] Zhou X R, Shang J, Qin M Y, et al. Fractionated antioxidant and anti-inflammatory kernel oil from Torreya fargesii[J]. Molecules,2019, 24(18):3402.
[16] 蒋起宏, 姚诗炜, 卢红伶, 等. 香榧油对肥胖小鼠脂质代谢紊乱的作用机制研究[J]. 食品与发酵工业,2024,50(8):176 -181.Jiang Q H, Yao S W, Lu H L, et al. Mechanism of Torreya seed oil on disturbance of lipid metabolism in obese mice[J]. Food and Fermentation Industries, 2024, 50(8):176 -181.
[17] Ma J C, Yuan T, Gao Y Q, et al. Torreya grandis oil attenuates cognitive impairment in scopolamine-induced mice[J]. Food &Function, 2023, 14(23):10520 -10534.
[18] Sun C Y, Cai X Y, Jiang X Q, et al. Neuroprotective alpha-linolenic acid derived from black pepper targets PGK1 and activates the Nrf2 pathway in PC12 cells and mice[J]. European Journal of Pharmacology, 2025, 1006:178154.
[19] 刘娅, Josef VOGLMEIR, 刘丽. 燕窝O-链寡糖组结构解析及对H2 O2 诱导的PC12 细胞抗氧化保护作用[J]. 食品工业科技,2025, 46(16):439 -448.Liu Y, Voglmeir J, Liu L. Structure analysis of O-glycans from edible bird’s nest and its antioxidant effects against H2 O2-induced oxidative damage in PC12 cells[J]. Science and Technology of Food Industry, 2025, 46(16):439 -448.
[20] Chen J, Chen Y X, Zheng Y F, et al. Relationship between neuroprotective effects and structure of procyanidins[J]. Molecules,2022, 27(7):2308.
[21] 杨文建, 俞杰, 裴斐, 等. 金针菇黄酮的制备、纯化及对PC12神经细胞的保护作用[J]. 中国食品学报, 2017, 17(3):46 -56.Yang W J, Yu J, Pei F, et al. Preparation and purification of flavonoids in Flammulina velutipes and its neuroprotective effect on PC12 cells[J]. Journal of Chinese Institute of Food Science and Technology, 2017, 17(3):46 -56.
[22] 玛依乐·艾海提, 刘垚杰, 李建科. 神经酸对H2 O2 诱导PC12细胞氧化损伤的保护作用[J]. 食品科学,2024,45(9):116 -123.Mayila A H T, Liu Y J, Li J K. Protective effect of nervonic acid on oxidative damage of PC12 cells induced by H2 O2 [J]. Food Science, 2024, 45(9):116 -123.