小麦蛋白肽是由氨基酸通过肽键连接而成的短链分子,具有抗氧化[1]、降血压、免疫调节[2]等多种重要的生理功能和作用,在食品、医药和功能性材料等领域展现出广阔的应用前景[3-4]。 然而,小麦面筋蛋白酶解液普遍存在苦味值过高的问题,严重限制了其感官接受度与商业化应用。 与此同时,随着酶法生产小麦蛋白肽在食品工业中的推广,制备过程中会不可避免地产生不溶性聚集体这一现象引起了广泛关注[5]。 这种聚集行为不仅不利于维持工业生产的连续性[5],更重要的是会导致可溶性多肽得率的显著降低[6],严重影响了产品的生产效率与附加值。 因此,阐明不溶性聚集体的形成机制及其结构变化规律,并探索可控调节途径,从而在降低上清液苦味的同时,挖掘并提升不溶性聚集体的利用价值,对解决酶解工艺中苦味重与得率低的难题具有重要意义。
pH 偏移处理是一种常用的蛋白质结构改性方法,通过瞬时改变体系pH,使蛋白质分子处于非平衡构象状态,诱导分子内外相互作用力重新分布[7]。随后的回调过程会促使蛋白质发生部分复性或再聚集,从而显著改变其空间构象和聚集特性[8]。 由于面筋蛋白中含有较多的酸性和碱性残基,其电荷分布和构象稳定性对pH 变化极为敏感,pH 偏移处理可通过调节分子电荷状态与疏水暴露程度,诱导不溶性聚集体的结构重排。 因此,pH 偏移有望成为调控面筋蛋白酶解体系中聚集体结构的有效策略。
已有研究表明,不溶性聚集体的形成主要由蛋白质构象重排和分子间作用力变化共同驱动,其中疏水作用、氢键、二硫键及静电相互作用在不同阶段的贡献存在差异[9]。 不溶性聚集体处于可逆的动态平衡状态,可在特定条件下发生解离或重组。 外界环境因子的调节,尤其是pH 偏移处理,能够显著影响蛋白质的电荷分布与分子构象,进而诱导不溶性聚集体的结构重排[10]。 然而,关于面筋蛋白酶解过程中形成的不溶性聚集体在瞬时pH 偏移下的结构响应规律,目前尚缺乏系统研究。
基于此,本研究以小麦面筋蛋白-Proteax 酶水解体系为研究对象,将体系pH 由7.0 瞬时调节至8.0 ~12.0后再回调至中性,考察瞬时pH 偏移对不溶性聚集体结构及上清液性质的影响。 通过测定聚集体得率、上清多肽苦味强度、粒径、疏水氨基酸比例、分子间相互作用力、内源荧光、红外光谱及表面疏水性等指标,系统分析pH 偏移诱导的不溶性聚集体解离与重组规律,并探讨其在提高可溶性多肽得率及增强不溶性聚集体中疏水氨基酸富集方面的作用机制,为小麦蛋白酶解体系中不溶性聚集体的可控调控提供理论依据。
1 材料与方法
1.1 材料与试剂
小麦面筋蛋白(蛋白质质量分数73.16%),安琪酵母股份有限公司;Proteax 酶,日本天野酶制剂有限公司。 无水乙醇、溴化钾、氢氧化钠、尿素、β-巯基乙醇、十二烷基硫酸钠、8-苯胺-1-萘磺酸(8-anilino-1-naphthalenesulfonic acid,ANS)、浓硫酸、盐酸、硼酸、甲基红指示剂、溴甲酚绿指示剂,天津致远化学试剂有限公司,其余试剂均为分析纯。
1.2 仪器与设备
AB204-N 电子分析天平,北京赛多利斯天平有限公司;ZD-85A 恒温数显磁力搅拌水浴锅,北京长安科学仪器厂;TG16-WS 台式高速离心机,湘仪离心机仪器有限公司;LGJ-25C 真空冷冻干燥机,北京四环科学仪器厂有限公司;BT-90Zeta 纳米粒度电位仪,丹东百特仪器有限公司;S-433D 全自动氨基酸分析仪,北京赛卡姆科学仪器有限公司;WQF-510A 傅里叶变换红外光谱仪(Fourier transform infrared spectroscopy,FT-IR),美国赛默飞世尔科技有限公司;FL-970Plus荧光分光光度计,上海天美科学仪器有限公司;Quanta 250 FEG 扫描电子显微镜(scanning electron microscope,SEM),美国FEI 公司。
1.3 实验方法
1.3.1 样品制备
以Proteax 酶为催化剂制备小麦面筋蛋白酶解液。 称取9 g 面筋蛋白粉溶于300 mL 去离子水中,制备质量浓度为30 g/L 的蛋白悬浮液。 室温磁力搅拌1 h 以充分水化后,于50 ℃、pH 7.0 条件下进行酶解。 酶与底物质量比为1∶100,反应过程中通过加入1 mol/L NaOH 或1 mol/L HCl 维持pH 恒定。 当水解度达到12% 时,迅速用1 mol/L NaOH 或1 mol/L HCl 调节体系pH 至7.0,获得基准酶解液。
将酶解液等分为6 组,其中对照组维持pH 7. 0(即代表未经偏移处理的初始聚集体状态),其余5组分别调节至pH 8、9、10、11、12,在相应pH 条件下维持1 h 后迅速回调至中性(pH 7.0)。 所有pH 调节均在50 ℃水浴条件下进行并持续搅拌。 pH 回调后,于4 ℃、8 000 r/min 离心20 min,收集沉淀作为不溶性聚集体(insoluble wheat gluten hydrolysate aggregates,IWGHA)。 沉淀经2 次去离子水洗涤后冷冻干燥,所得样品用于后续结构与性质分析。 所有样品均平行制备3 份, -20 ℃保存备用。
1.3.2 不溶性聚集体得率测定
离心后所得IWGHA 经冷冻干燥称重,质量记为m1,未水解面筋蛋白质量记为m。 采用凯氏定氮法测定IWGHA 和原料蛋白的蛋白质质量分数[11],分别记为c1和c。 IWGHA 得率计算如公式(1)所示:
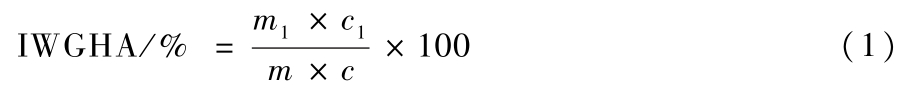
式中:m1 ×c1,IWGHA 中蛋白质的实际质量,g;m ×c,初始体系中蛋白质的总质量,g。
1.3.3 苦味感官测定
样品苦味强度参照Wei 等[12]方法测定。 邀请10 名受过专业训练的评估员(男性5 名,女性5 名,年龄20 ~35 岁),均具有不少于1 年蛋白水解物感官评价经验。 以奎宁为苦味标准物质,配制质量浓度为0、8 ×10⁻⁶、1.6 ×10⁻⁵、2.4 ×10⁻⁵、3.2 ×10⁻⁵、4.0 ×10⁻⁵ g/mL 的标准溶液,分别对应苦味强度0 ~5 分。 样品以质量浓度为10 g/L 的溶液形式配制,pH 调至6.5。 为消除偏差,所有样品均采用随机生成的3 位数字编码进行标记,并以随机顺序呈现。 评价过程在标准感官实验室的独立隔间中进行,全程保持双盲状态。 在室温下与标准溶液对比评分。 每位评估员每次不超过3 种样品,避免味觉疲劳。 每个样品独立重复3 次,取平均值作为最终苦味强度。
1.3.4 粒径测定
粒径测定参照Li 等[13]方法。 将样品用pH 7.0的0.01 mol/L 磷酸盐缓冲液稀释至0. 5 mg/mL,离心(8 000 r/min,10 min)取上清液。 采用纳米粒子激光光散射仪于25 ℃下测定,散射角为173°。 每个样品测定11 次,测试时间10 s,平衡时间120 s。 平均粒径由软件自动计算输出。
1.3.5 氨基酸组成测定
采用酸水解法测定样品氨基酸组成[14]。 取0.2 g冻干样品,加入5 mL 6 mol/L 盐酸,在氮气气氛下鼓吹20 s 后密封,于110 ℃下水解22 ~24 h。 冷却后以去离子水定容至50 mL,取5 mL 水解液,在氮气流下蒸干残余盐酸,残渣溶于10 mL 0.02 mol/L 盐酸中,经0.22 μm 滤膜过滤。 采用自动氨基酸分析仪测定16 种常规氨基酸含量。
1.3.6 二级结构分析
采用FTIR 分析IWGHA 的二级结构[15],取2 mg冻干样品与200 mg 溴化钾混匀研磨,压片后在400 ~4 000 cm-1波数范围内扫描,分辨率1 cm-1,扫描32次。 所得光谱经基线校正和平滑处理后,利用PeakFit 4.12 软件对酰胺Ⅰ区(1 600 ~1 700 cm-1)进行高斯拟合,计算α-螺旋、β-折叠、β-转角和无规卷曲等结构相对含量。
1.3.7 分子间相互作用力分析
参考Zhang 等[16-17]的方法并加以改进,通过选择性溶剂法测定IWGHA 样品中主要分子间相互作用力。 分别配制4 种溶剂体系:0.6 mol/L NaCl(S1,破坏离子键)、0.6 mol/L NaCl +1.5 mol/L 尿素(S2,进一步破坏氢键)、0. 6 mol/L NaCl + 8 mol/L 尿素(S3,破坏疏水作用)以及0.6 mol/L NaCl +8 mol/L尿素+ 0. 5 mol/L β-巯基乙醇(S4,用于破坏二硫键)。 取50 mg 冻干样品,分别加入10 mL 不同溶剂中,涡旋混匀2 min,于4 ℃、8 000 r/min 离心10 min。上清液蛋白质含量采用双缩脲法测定[18]。 根据溶解度差计算各作用力对应的结合比例,溶解度计算如公式(2)所示:
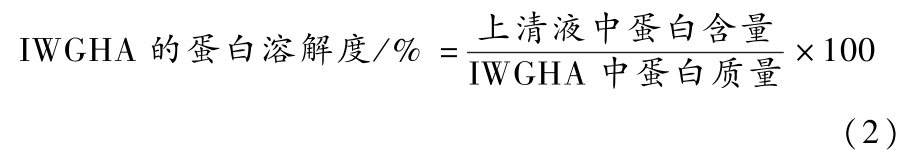
1.3.8 内源荧光测定
参考Wang 等[19]方法。 将冻干样品溶解于去离子水并稀释至1 mg/mL,在荧光分光光度计上以290 nm为激发波长、300 ~500 nm 为发射波长范围进行测定,狭缝宽度均为5 nm,室温下测定。 通过比较不同处理样品的荧光峰位与峰强,分析蛋白质构象中Trp残基微环境变化。
1.3.9 表面疏水性测定
采用ANS 荧光探针法测定样品表面疏水性[20-21]。将ANS 溶解于pH 7.2、0.05 mol/L 磷酸盐缓冲液中制备8 mmol/L 储备液。 样品溶于0.01 mol/L PBS 并稀释至0.5 mg/mL,取5 mL 蛋白溶液加入100 μL ANS溶液,避光孵育15 min。 采用荧光分光光度计测定,激发波长390 nm,发射波长400 ~600 nm,狭缝宽度5 nm,扫描速率240 nm/min。 以PBS-ANS 溶液为空白,测量温度25 ℃。 根据荧光发射面积计算表面疏水性指数。
1.3.10 微观形貌的观察
取适量冻干后的IWGHA 样品粉末,均匀黏附于贴有导电胶的样品台上。 利用离子溅射仪对样品表面进行喷金处理(时间45 s),以增加导电性。 随后将其置于SEM 样品室中,在加速电压为15.0 kV 的条件下,选取合适的放大倍数观察样品的表面形貌特征并采集图像。
1.4 数据处理与分析
所有实验均独立重复3 次,结果以“平均值± 标准差”表示。 数据采用SPSS 22.0 软件分析,组间差异通过单因素方差分析(One-way ANOVA)检验,显著性比较使用Duncan 多重范围检验,显著性水平设为P <0.05。
2 结果与分析
2.1 pH 偏移对不溶性聚集体得率和蛋白含量的影响
沉淀得率可反映酶解后蛋白质在体系中形成不溶性聚集体的程度,是评价聚集行为强弱及其与上清液中多肽分布关系的重要指标[22]。 如图1 所示,随着pH 回调处理强度的增加,不溶性聚集体得率呈现逐渐下降的趋势,从23.51% 下降至18.81%。 这是因为Proteax 酶的广谱剪切作用使得酶解产物中富含大量暴露疏水基团的短肽,这些疏水片段形成的聚集结构在适度碱性偏移(pH 8 ~9)下被有效破坏,促使部分被裹挟的短肽释放进入上清液;而随着pH 进一步升高,酶解产生的小分子肽链展开程度增大,原有空间结构被深度破坏,导致重排过程中无法完全恢复聚集状态。 不溶性聚集体中蛋白质含量与得率变化趋势的一致性表明,pH 偏移不仅降低了聚集体的生成量,也改变了其蛋白质富集特性,从而使更多小分子肽保留在可溶相中,提升了多肽得率。
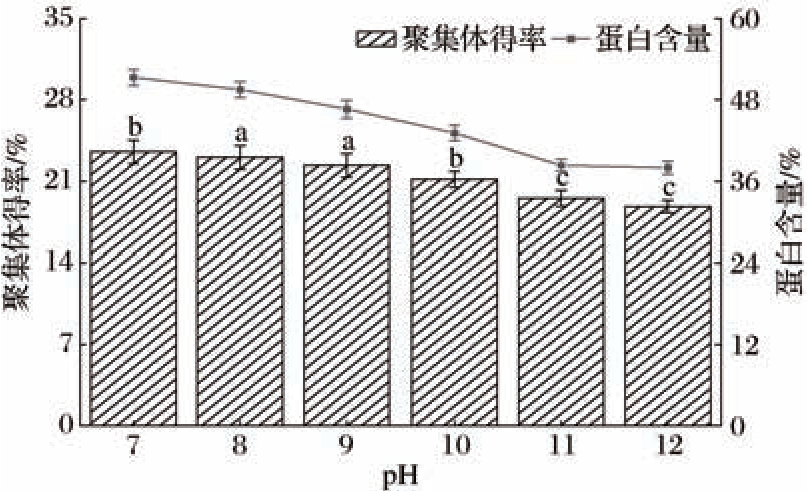
图1 不同pH 偏移处理对不溶性聚集体得率和蛋白含量的影响
Fig.1 Effects of different pH-shift treatments on the yield and protein content of IWGHA
注:图中不同小写字母表示显著差异(P <0.05)(下同)。
2.2 pH 偏移对上清液多肽苦味感官评分的影响
上清液多肽的苦味强度可反映不同pH 偏移处理对酶解体系风味质量的调控效果[23],也是评价苦味肽分布变化的重要指标。 如图2 所示,苦味评分随偏移pH 的增加呈现先降低后升高的趋势,其中pH 10 处理的苦味最低(0.80),脱苦效果最为显著。其主要原因在于,Proteax 酶解产生的多肽混合物中含有大量暴露疏水基团的苦味肽段。 当偏移pH 处于8 ~10 时,这些由酶解释放的疏水性片段更容易通过增强的疏水相互作用参与聚集体的重排与缔合,从而优先被富集在不溶性聚集体中,导致上清液中苦味肽残留减少。 然而,当偏移pH 超过10 时,过强的碱性环境导致这些短肽链表面电荷密度过高,静电排斥力破坏了酶解产物间的疏水聚集力,引起部分疏水性苦味片段重新溶解并释放至上清液,导致苦味回升。综上,pH 10 的偏移处理能够最有效地促进疏水苦味肽向不溶性聚集体迁移,从而降低上清液苦味,实现最佳脱苦效果。
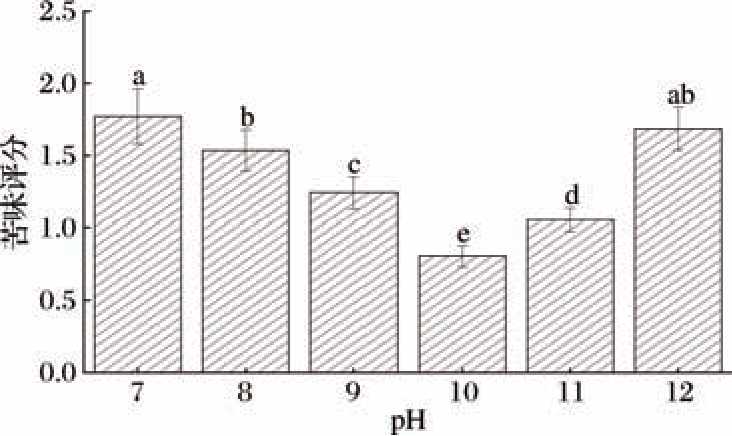
图2 不同pH 偏移处理对上清液多肽苦味感官评分的影响
Fig.2 Effects of different pH-shift treatments on the bitterness scores of WGP
2.3 pH 偏移对不溶性聚集体氨基酸组成的影响
氨基酸的组成,尤其是疏水性氨基酸的占比能够反映不溶性聚集体中疏水残基的富集程度,是揭示蛋白质分子聚集机制及其与苦味物质结合能力的重要指标[24]。 如表1 所示,随pH 回调强度的增加,不溶性聚集体中疏水性氨基酸占比呈现先升高后降低的趋势。 尤其是pH 10 处理组,其不溶性聚集体中疏水性氨基酸总比例达到最高值51. 99%。 值得注意的是,这一变化趋势与上清液苦味评分的结果(图2)呈现高度的构效对应关系:pH 10 处沉淀中疏水性氨基酸(特别是Phe、Leu 等典型呈苦氨基酸)的显著富集,精确对应了上清液苦味评分的最低点(0. 80)。这也说明,pH 偏移诱导的结构重排促使原本游离在上清液中的疏水性苦味肽,被成功富集在不溶性聚集体的疏水核心中,从而实现了脱苦。 因此,pH 10 回调所得不溶性聚集体中疏水性氨基酸比例最高,表明其疏水核心最为致密,有助于苦味肽被有效吸附或包埋,实现对上清液苦味的显著降低。
表1 不同pH 偏移处理对不溶性聚集体中氨基酸组成的影响单位:g/100 g Table 1 Effects of different pH-shift treatments on the amino acid composition of IWGHA

氨基酸含量pH 7pH 8pH 9pH 10pH 11pH 12异亮氨酸(Ile)3.09 ±0.03d3.27 ±0.06c3.42 ±0.05b3.68 ±0.09a3.58 ±0.11ab3.31 ±0.07b苏氨酸(Thr)1.68 ±0.37a1.63 ±0.02a1.58 ±0.02b1.51 ±0.01c1.56 ±0.03b1.61 ±0.03ab丝氨酸(Ser)2.80 ±0.39a2.70 ±0.05b2.70 ±0.01b2.52 ±0.05c2.56 ±0.03c2.67 ±0.07b谷氨酸(Glu)12.50 ±0.58a12.21 ±0.13a11.82 ±0.28b11.61 ±0.06c11.58 ±0.29c11.79 ±0.1b甘氨酸(Gly)1.77 ±0.29a1.73 ±0.03a1.65 ±0.01b1.59 ±0.04c1.65 ±0.04b1.70 ±0.04ab丙氨酸(Ala)1.85 ±0.02c1.94 ±0.05c2.06 ±0.05b2.18 ±0.04a2.13 ±0.03a2.01 ±0.02b缬氨酸(Val)2.74 ±0.03c2.87 ±0.06c3.08 ±0.03b3.22 ±0.05a3.12 ±0.06ab2.96 ±0.05b蛋氨酸(Met)0.14 ±0.02a0.14 ±0.01a0.13 ±0.01a0.13 ±0.01a0.14 ±0.01a0.14 ±0.01a亮氨酸(Leu)5.28 ±0.05d5.59 ±0.10c5.83 ±0.06c6.31 ±0.18a6.06 ±0.05b5.68 ±0.15c酪氨酸(Tyr)1.58 ±0.01a1.55 ±0.02a1.52 ±0.03b1.43 ±0.01c1.45 ±0.03c1.50 ±0.02b苯丙氨酸(Phe)3.42 ±0.02c3.56 ±0.09bc3.84 ±0.09a4.08 ±0.07a3.97 ±0.04a3.67 ±0.06b赖氨酸(Lys)1.61 ±0.01a1.57 ±0.03a1.51 ±0.03b1.44 ±0.02c1.49 ±0.03b1.54 ±0.04ab组氨酸(His)1.19 ±0.01a1.16 ±0.03a1.13 ±0.02ab1.09 ±0.01b1.10 ±0.03b1.15 ±0.02a脯氨酸(Pro)5.57 ±0.01a5.49 ±0.09a5.33 ±0.04ab5.02 ±0.14c5.07 ±0.10c5.28 ±0.11b精氨酸(Arg)2.48 ±0.35a2.44 ±0.01a2.32 ±0.04b2.26 ±0.03c2.32 ±0.02b2.34 ±0.02b天冬氨酸(Asp)2.57 ±0.40a2.52 ±0.06a2.46 ±0.02b2.34 ±0.01c2.36 ±0.04c2.44 ±0.05b
注:同一行中不同上标字母表示参数具有显著性差异(P <0.05)。
2.4 pH 偏移对不溶性聚集体粒径的影响
粒径能够反映不溶性聚集体的紧密程度和结构状态,是评价pH 回调对聚集行为影响的重要指标[9]。 如图3 所示,随pH 回调强度增加,不溶性聚集体的体积平均粒径先增大后减小:从对照组pH 7 的39.67 μm 逐步上升,在pH 10 达到最大值49.19 μm,随后在pH 11 和12 时降至44.07 μm 和37.02 μm。这种趋势表明,适度碱性环境(pH 8 ~10)可促进蛋白质分子部分解折叠[25],疏水基团暴露并增强分子间疏水作用和二硫键交换,形成了宏观尺寸更大的团聚体,从而表现为测定粒径的增加;而pH 进一步升高(pH >10)时,肽链去质子化引起的静电排斥增强,导致聚集受阻并使粒径减小。 因此,pH 10 处理形成的不溶性聚集体粒径最大,有利于疏水肽段被有效包埋,实现苦味肽的去除与体系稳定性的兼顾。
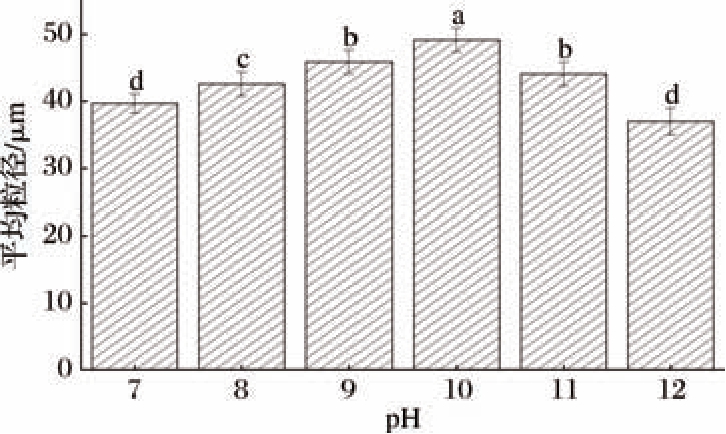
图3 不同pH 偏移处理对不溶性聚集体粒径的影响
Fig.3 Effects of different pH-shift treatments on the particle size of IWGHA
2.5 pH 偏移对不溶性聚集体二级结构的影响
蛋白质二级结构能够反映分子内氢键的稳定性和空间构象有序程度,是揭示不溶性聚集体构象重排与结构稳定性变化的重要依据[26]。 如图4 所示,随pH 回调强度的增加,不溶性聚集体中α-螺旋含量逐渐下降(由19.48%降至12.10%),而β-折叠和β-转角结构含量先升后降,分别在pH 10 时达到最大值(37.81%和33.28%);随机卷曲比例在高pH 条件下显著增加。 整体来看,体系经历了由有序螺旋向以β-折叠为主的重排过程。 这一结构演变主要源于pH偏移过程中分子内作用力的断裂与重组。 在pH 偏移阶段(瞬时状态),碱性环境导致的强静电排斥力破坏了维系α-螺旋的氢键网络,促使蛋白质分子发生部分解折叠与伸展[27];与完整蛋白不同,经Proteax酶解后的肽链分子柔性增加,在pH 回调诱导的重折叠过程中,这些短肽链难以恢复天然α-螺旋构象,而是倾向于通过分子间疏水相互作用和氢键重新缔合,形成热力学上更为稳定的β-折叠聚集体。 这种由pH 偏移驱动、酶解特性辅助的结构重排,使得pH 10条件下形成的不溶性聚集体兼具较高的β-折叠比例和致密的堆积结构。
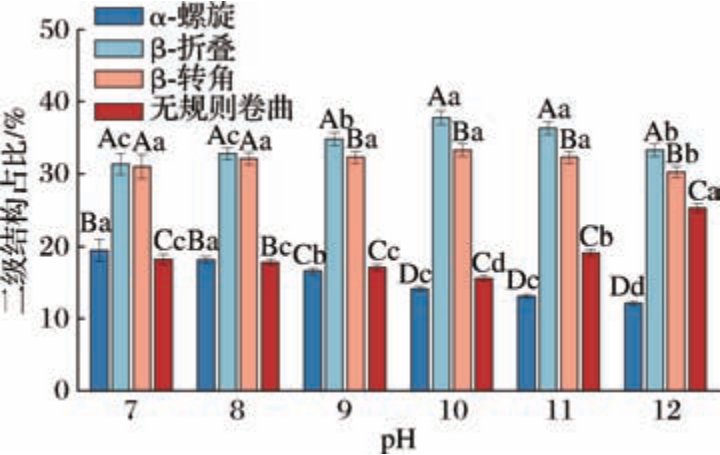
图4 不同pH 偏移处理对不溶性聚集体二级结构的影响
Fig.4 Effects of different pH-shift treatments on the secondary structure of IWGHA
注:图中不同大写字母表示同一pH 下结构之间的显著差异(P <0.05)。
2.6 pH 偏移对不溶性聚集分子间作用力的影响
分子间作用力能够揭示不溶性聚集体的主要稳定机制,是分析不溶性聚集体结构重排与形成驱动力的重要依据[28]。 如图5 所示,随pH 回调强度的增加,疏水相互作用的相对比例显著升高,由58. 55%上升至pH 10 的峰值65.87%,随后逐渐下降。 这主要是由于碱性环境增强了静电排斥,导致原有的离子键与氢键断裂、分子构象松弛;而在回调过程中,暴露的疏水基团驱动分子重排,形成了以疏水相互作用为主导(pH 10 时占比最高)的新型聚集体结构。 这种强疏水驱动的致密网络有利于在重组过程中吸附疏水性苦味肽,实现了结构稳定性与脱苦功能的同步优化。
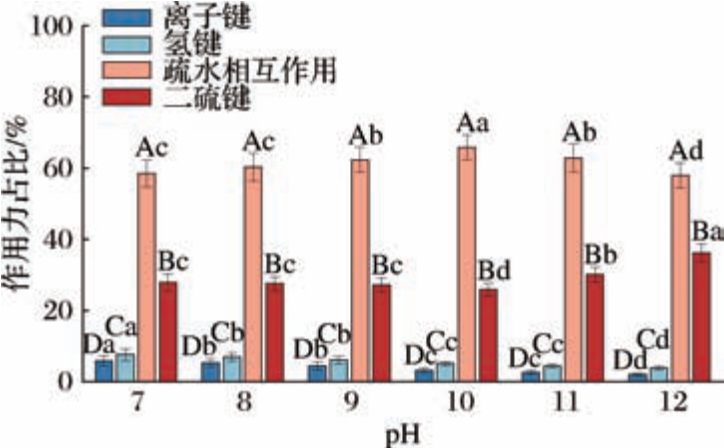
图5 不同pH 偏移处理对不溶性聚集体分子间作用力的影响
Fig.5 Effects of different pH-shift treatments on the intermolecular interactions of IWGHA
注:图中不同大写字母表示同一pH 下作用力之间的显著差异(P <0.05)。
2.7 pH 偏移对不溶性聚集体表面疏水性的影响
表面疏水性能够反映蛋白质分子疏水残基在表面的暴露程度,是表征蛋白质构象松弛程度及疏水相互作用强弱的重要指标。 如图6 所示,随pH 回调强度的增加,不溶性聚集体表面疏水性呈先升高后下降趋势,并在pH 10 时达到峰值(21 978.32)。 这表明适度碱性偏移使蛋白质三级结构展开,原本深埋的疏水基团充分暴露;而在pH 回调后,这些暴露的疏水基团通过疏水相互作用驱动分子聚集与重排,形成了新的疏水核心[29]。 pH 10 时最高的表面疏水性值意味着此时聚集体具有最强的疏水结合潜力,有助于通过疏水相互作用富集苦味肽,形成稳定的疏水嵌合网络。
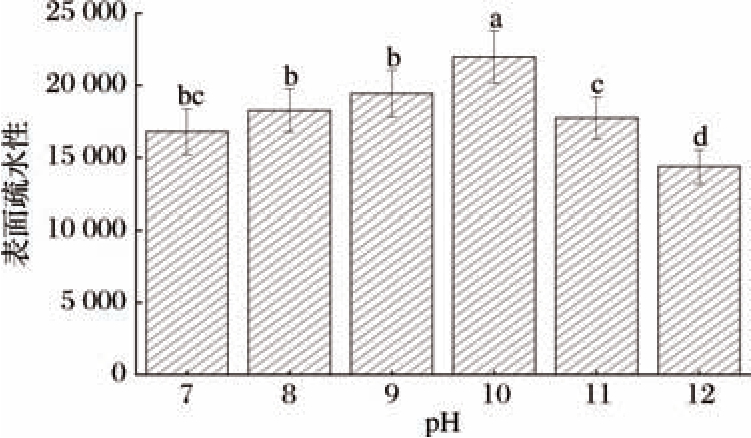
图6 不同pH 偏移处理对不溶性聚集体表面疏水性的影响
Fig.6 Effects of different pH-shift treatments on the surface hydrophobicity of IWGHA
2.8 pH 偏移对不溶性聚集体内源荧光的影响
蛋白质的内源荧光主要来源于色氨酸残基,其发射强度和波长位置能够反映分子构象及疏水环境的变化,是表征蛋白质结构重排与疏水暴露程度的重要手段[20]。 如图7 所示,随pH 回调强度的增加,不溶性聚集体的最大发射波长整体呈先红移后蓝移趋势,而最大荧光强度则先降低后显著升高,在pH 10 时达到最高值(8 220)。 这一趋势表明,经pH 7 ~9 处理后,聚集体结构仍较为松散,导致色氨酸残基更多地暴露于外部的极性水相溶剂中;而在pH 10 处理组中,增强的疏水相互作用驱动了肽链的致密堆积,促使色氨酸残基被重新包埋于聚集体内部的非极性疏水核心。 这种变化主要由pH 偏移引发的分子构象松弛与疏水基团重排所驱动。 碱性环境破坏了部分氢键和静电作用,使蛋白质结构松散、疏水残基外露,从而导致荧光强度下降、波长红移[30];随着pH 回调至中性,分子间重新发生疏水嵌合与构象收缩,使色氨酸残基重新埋入疏水核心,荧光强度增强、波长蓝移。 这一结果证实了聚集体内部形成了稳定的疏水网络结构,而该结构正是后续实现苦味肽高效吸附与物理包埋的关键基础。
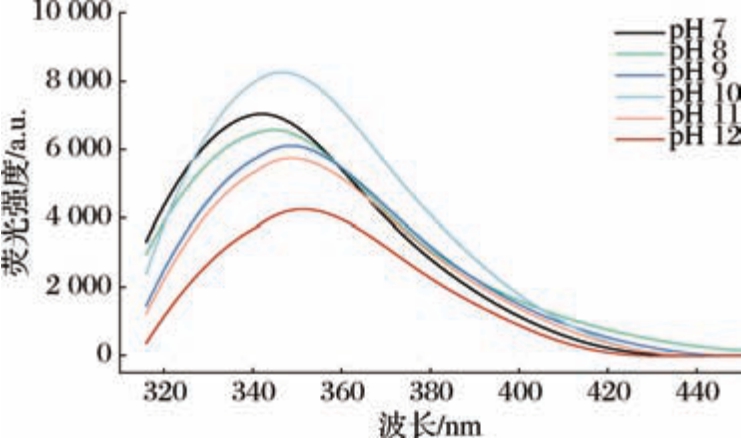
图7 不同pH 值偏移处理对不溶性聚集体内源荧光的影响
Fig.7 Effects of different pH-shift treatments on the intrinsic fluorescence spectra of IWGHA
2.9 pH 偏移对不溶性聚集体微观形貌的影响
微观形貌是表征蛋白质聚集体空间结构状态最直观的依据[31]。 如图8 所示,不同处理组的微观形貌呈现出显著差异。 未经偏移处理的对照组(pH 7)呈现出表面粗糙、质地疏松且伴有大量孔隙的不规则结构,表明此时聚集体内部的分子间结合力相对较弱,排列较为无序。 相比之下,经pH 10 偏移处理后,不溶性聚集体发生了明显的形态重塑:其表面变得较为平整光滑,细小的碎片相互融合形成了尺寸更大的块状结构,且颗粒之间呈现出高度致密的堆积状态,原有的疏松孔隙结构明显减少。 这种由疏松多孔结构转变为致密平滑的结构,主要归因于pH 偏移诱导的蛋白质构象重排机制。 适度碱性环境促使蛋白质分子展开并暴露出内部的疏水基团,在回调至中性的过程中,这些疏水区域通过强烈的疏水相互作用驱动多肽链发生紧密堆积与交联,从而填补了分子间的空间孔隙,形成了更为稳固的聚集网络。 这一微观证据有力地证实了pH 10 处理组粒径的增大并非是松散的物理絮凝,而是形成了结构更加致密的聚合体。 这种致密的聚集体结构有利于将疏水性苦味肽有效富集在聚集体内部,阻断其释放进入上清液,从而为pH 10处理组表现出最佳脱苦效果提供了直观的依据。

图8 不同pH 偏移处理对不溶性聚集体微观形貌的影响
Fig.8 Effects of different pH-shift treatments on the micromorphology of IWGHA
3 结论与讨论
研究证明,pH 偏移可作为一种有效的改性手段,通过调控Proteax 酶解小麦面筋蛋白体系中不溶性聚集体的“解聚-重组”过程,显著改善酶解液的风味品质。 研究发现,适度的碱性偏移(pH 10)诱导不溶性聚集体发生了显著的结构重排:在分子层面,表现为以β-折叠为主的有序结构增加、内源荧光蓝移及疏水相互作用增强;在微观形貌层面,SEM 结果直观地证实了聚集体由未经处理时的疏松多孔状态,转变为致密平滑的稳定结构。 这种结构变化表明,Proteax酶解产生的富含疏水基团的短肽链,在pH 回调过程中通过强疏水相互作用驱动,形成了致密的疏水核心网络,驱动了疏水性苦味肽从上清液向聚集体内部迁移,导致不溶性聚集体中疏水性氨基酸比例显著升高至(51.99 ±0.25)%,从而促使上清液苦味评分同步降低至0.80。 此外,该重排过程还伴随着不溶性聚集体得率的降低,表明部分可溶性多肽在此过程中被释放并复溶,进而有效提升了可溶性多肽的得率。 综上所述,本研究结果证实了pH 偏移技术在不引入外源添加剂的前提下,通过构建致密的聚集体结构协同实现了脱苦与增产,为解决小麦蛋白酶解工业中苦味重、得率低的瓶颈问题提供了切实可行的理论依据与技术支持。
[1] Ferraioli A, Miele N A, Di Pierro P, et al. Enzymatic extraction increases the recovery of protein and antioxidant compounds from wheat bran[J]. LWT, 2025, 234:118575.
[2] Cruz-Chamorro I, Álvarez-Sánchez N, Santos-Sánchez G, et al. Immunomodulatory and antioxidant properties of wheat gluten protein hydrolysates in human peripheral blood mononuclear cells[J]. Nutrients, 2020, 12(6):1673.
[3] Guo C Q, Ling N, Tian H Y, et al. Comprehensive review of extraction, purification, structural characteristics, pharmacological activities, structure-activity relationship and application of seabuckthorn protein and peptides[J]. International Journal of Biological Macromolecules, 2025, 294:139447.
[4] Chen X S, Yang J, Mao Y N, et al. Debittering of peanut protein hydrolysate using 2-butanol in combination with β-cyclodextrin:Impact on some physicochemical characteristics and antioxidant activities[J]. Food Biophysics, 2024, 20(1):25.
[5] Ji Y L, Xue J, Wu J Y, et al. Plant-derived insoluble protein aggregates:Formation mechanisms, influencing factors, solubilization,functional properties, and applications[J]. Food Chemistry:X,2025, 31:103042.
[6] Du X J, Jing H J, Wang L, et al. pH-shifting formation of goat milk casein nanoparticles from insoluble peptide aggregates and encapsulation of curcumin for enhanced dispersibility and bioactivity[J].LWT, 2022, 154:112753.
[7] 董月婕. 碱性pH 偏移结合超声处理改性花生蛋白及其应用[D]. 郑州:河南工业大学, 2025.Dong Y J. Alkaline pH shift combined with ultrasonic treatment modified peanut protein and its application[D]. Zhengzhou:Henan University of Technology, 2025.
[8] Huang G, Liu G C, Xu Z J, et al. Stability, rheological behavior and microstructure of Pickering emulsions co-stabilized by soy protein and carboxymethyl chitosan[J]. Food Hydrocolloids, 2023,142:108773.
[9] Li Z Y, Yin C P, Wang Y, et al. Physicochemical, structural, foaming, and rheological properties of soybean peptide aggregates obtained from enzymatic by-products[J]. Food Hydrocolloids, 2025,164:111224.
[10] Liu Y, Guo R. Aggregation properties of aqueous casein hydrolysate solutions at different pH[J]. International Dairy Journal,2008, 18(10 -11):1022 -1027.
[11] Tao Y Q, Chen Y, Howard W, et al. Mechanism of insoluble aggregate formation in a reconstituted solution of spray-dried protein powder[J]. Pharmaceutical Research,2023,40(10):2355 -2370.
[12] Wei L, Shi C, Li D C, et al. Discovery of novel umami peptides and their bitterness masking effects from yellowfin tuna (Thunnus albacares) via peptidomics, multisensory evaluation, and molecular docking approaches[J]. Food Chemistry, 2025, 489:145028.
[13] Li Q, Fu Y, Zhang L T, et al. Plastein from hydrolysates of porcine hemoglobin and meat using Alcalase and papain[J]. Food Chemistry, 2020, 320:126654.
[14] Wang J, Wang G L, Chen N, et al. Characterization of structural,functional and antioxidant properties and amino acid composition of pepsin-derived glutelin-1 hydrolysate from walnut processing byproducts[J]. RSC Advances, 2021, 11(31):19158 -19168.
[15] Tao X, Cai Y J, Liu T X, et al. Effects of pretreatments on the structure and functional properties of okara protein [J]. Food Hydrocolloids, 2019, 90:394 -402.
[16] Zhang T, Yuan Y X, Wu X L, et al. The level of sulfate substitution of polysaccharide regulates thermal-induced egg white protein gel properties:The characterization of gel structure and intermolecular forces[J]. Food Research International, 2023, 173:113349.
[17] Zhang Y H, Zhou F B, Zhao M M, et al. Soy peptide aggregates formed during hydrolysis reduced protein extraction without decreasing their nutritional value[J]. Food & Function, 2017, 8(12):4384 -4395.
[18] Miranda M P. Comparison of the effect of Sodium Chloride concentration on protein determination:Bradford and Biuret methods[J].Analytical Biochemistry, 2024, 687:115450.
[19] Wang S N, Liu X L, Zhao G L, et al. Protease-induced soy protein isolate (SPI) characteristics and structure evolution on the oil- water interface of emulsion[J]. Journal of Food Engineering,2022, 317:110849.
[20] Xiong Z Y, Weng T T, Wang J H, et al. Regulatory mechanisms of phosphorylation in ovalbumin self-assembly for aggregates formation:Insights into size, structure, and morphology [ J]. Food Hydrocolloids, 2024, 157:110431.
[21] Xu Y T, Liu L L. Structural and functional properties of soy protein isolates modified by soy soluble polysaccharides[J]. Journal of Agricultural and Food Chemistry, 2016, 64(38):7275 -7284.
[22] Zhang X Y, Hao J Q, Ma D H, et al. Alcalase-hydrolyzed insoluble soybean meal hydrolysate aggregates:Structure, bioactivity,function properties, and influences on the stability of oil-in-water emulsions[J]. International Journal of Biological Macromolecules,2024, 265:131014.
[23] Jiang Y Q, Luo Z, Xiang F L, et al. Fabrication and encapsulation of soy peptide nanoparticles using ultrasound followed by spray drying[J]. Foods, 2024, 13(23):3967.
[24] Sharma K, Nilsuwan K, Zhang B, et al. Protein hydrolysate from salmon frame debittered by plastein reaction:Amino acid composition, characteristics and antioxidant activities[J]. International Journal of Food Science & Technology, 2023, 58(1):154 -166.
[25] Jiang J, Wang Q L, Xiong Y L. A pH shift approach to the improvement of interfacial properties of plant seed proteins[J]. Current Opinion in Food Science, 2018, 19:50 -56.
[26] Liu C H, Liu W, Feng Z B, et al. Aggregation of whey protein hydrolysate using Alcalase 2. 4 L[J]. PLoS One, 2014, 9(10):e109439.
[27] 贾立奥, 王颖颖, 寇锟, 等. pH 偏移预处理对核桃蛋白-羧甲基壳聚糖复合颗粒的影响及在高内相Pickering 乳液中的应用[J]. 食品与发酵工业, 2025, 51(21):243 -253.Jia L A, Wang Y Y, Kou K, et al. Effect of pH migration pretreatment on walnut protein-carboxymethyl chitosan composite particles and its application in high internal phase Pickering emulsion[J].Food and Fermentation Industries, 2025, 51(21):243 -253.
[28] Peng Q Y, Wang T, Yang D L, et al. Recent advances in coacervation and underlying noncovalent molecular interaction mechanisms[J]. Progress in Polymer Science, 2024, 153:101827.
[29] 周向军, 董瑞红, 高义霞. pH 偏移结合温和热处理对蚕豆分离蛋白结构和功能的影响[J]. 食品与发酵工业, 2019, 45(1):100 -108.Zhou X J, Dong R H, Gao Y X. Effects of pH-shifting combined with mild heating processes on structural and functional properties of broad bean protein isolates[J]. Food and Fermentation Industries, 2019, 45(1):100 -108.
[30] 王小媛, 张珊珊, 魏肖鹏, 等. 高压均质联合pH 偏移改善鹰嘴豆分离蛋白功能特性的研究[J]. 食品与发酵工业, 2025,51(21):198 -206.Wang X Y, Zhang S S, Wei X P, et al. Improvement of functional properties of chickpea isolate protein by high-pressure homogenization combined with pH-shift[J]. Food and Fermentation Industries, 2025, 51(21):198 -206.
[31] 李静, 韦昀姗, 张智勇, 等. 红曲霉与枯草芽孢杆菌发酵法制备铁螯合花生肽:结构表征与稳定性研究[J]. 食品与发酵工业, 2026, 52(5):279 -287; 313.Li J, Wei Y S, Zhang Z Y, et al. Preparation of iron-chelated peanut peptides by fermentation with Monascus anka with Bacillus subtilis:Structural characterization and stability studies[J]. Food and Fermentation Industries, 2026, 52(5):279 -287; 313.