乳酸菌作为一类重要的益生微生物,广泛应用于食品发酵领域,其通过产酸、酶解及代谢转化等作用,不仅能改善食品质构与风味,还可提升食品的功能特性,增强抗氧化[1]、降血糖[2]及调节肠道菌群[3]等活性,传统发酵食品正是利用其中本身携带以及开放环境的微生物群落进行发酵的,如四川泡菜[4]、贵州酸汤发酵[5]、郫县豆瓣酱[6]等。
近年来,随着功能性食品需求的增长,针对特定基质的乳酸菌筛选及其发酵调控成为研究热点。 天麻(Gastrodia elata Blume)作为传统药食同源植物,富含天麻素、多糖、多酚等多种活性成分[7],具有镇静、抗氧化、降血糖等多种生理功能[8-10]。 然而,天麻直接食用或加工过程中活性成分溶出率低、风味单一等问题限制了其高值化利用。 利用乳酸菌发酵天麻,有望通过微生物代谢作用改变天麻成分组成,释放结合态活性物质,并可能生成新的功能成分,从而提升其营养与功能价值。 目前,针对天麻的乳酸菌发酵研究尚处于起步阶段,缺乏系统筛选适宜发酵菌株及明确其发酵调控机制的研究。 因此,本研究从传统发酵食品中筛选具有优良生理特性的乳酸菌,评价其在天麻发酵过程中对活性成分、抗氧化及降血糖相关活性的影响,旨在为开发功能强化型天麻发酵产品提供理论支持与菌种储备。
此外,乳酸菌作为一类环境适应性强、代谢多样的微生物,其在泡菜等传统发酵食品中的优异表现往往预示着其在其他植物基质或中药材发酵中亦具备良好的功能转化潜力。 例如,植物乳植杆菌(Lactiplantibacillus plantarum)已被广泛用于果蔬、豆类及药食同源材料的发酵[11-12],能够显著提升多酚、黄酮等活性成分的含量并增强抗氧化能力;短乳杆菌(Levilactobacillus brevis) 与戊糖片球菌(Pediococcus pentosaceus)亦在多种发酵体系中表现出良好的产酸、产酶及代谢转化活性[13]。 因此,本研究筛选获得的R2、R4 与RC 菌株不仅适用于天麻发酵,亦有望拓展至其他中药材或功能性食品的发酵开发中,具备良好的应用前景。
1 材料与方法
1.1 材料与试剂
泡菜,采集于甘孜州丹巴县;天麻,由四川赤健中药科技有限公司提供,干制后保存;淀粉酶(50 000 U/g)、纤维素酶(10 000 U/g)、糖化酶(50 000 U/g),成都市科龙化学品有限公司;乙腈/甲醇(色谱纯),上海阿拉丁生化科技股份有限公司;DPPH、ABTS、天麻素、对羟基苯甲醇、对羟基苯甲醛、柠檬酸酯E、柠檬酸酯B、巴利苷A、磷酸、福林酚、碳酸钠、亚硝酸钠、水溶性维生素E、芦丁、没食子酸、三吡啶基三嗪等(分析纯),上海源叶生物科技有限公司。
1.2 仪器与设备
SW-CJ-1D 超净工作台,苏州净化设备有限公司;LHS-250HC-I 恒温培养箱,上海一恒科学仪器有限公司;Sigma 3K15 冷冻离心机,Sigma 公司;LX-800 多功能酶标仪,美国伯腾仪器有限公司;1290 Infinity Ⅱ高效液相色谱仪,Agilent 公司。
1.3 实验方法
1.3.1 乳酸菌的筛选与纯化
取样及均质:取泡菜样品10 g 置于无菌三角瓶,加入90 mL 无菌生理盐水(8.5 g/L),手动振荡5 min,形成均匀菌悬液。 全过程在超净工作台内操作。
静置:将菌悬液置于超净工作台内,室温静置10 min,使大颗粒杂质自然沉淀。
稀释培养:采用梯度稀释法,取上清液1 mL,用无菌生理盐水以10 倍梯度依次稀释制得10-2 ~10-7稀释液;吸取100 μL 稀释液均匀涂布于MRS 固体培养基表面;37 ℃厌氧培养48 h。
初筛与纯化:观察MRS 固体培养基上菌落形态,挑取形态清晰的单菌落,在MRS 平板上反复划线纯化,直至获得纯培养物。
菌种鉴定:纯化菌株经镜检后,送至擎科生物科技股份有限公司进行分子生物学鉴定。
菌种保藏:将鉴定后的乳酸菌接种于MRS 液体培养基,37 ℃厌氧培养24 h。 取1 mL 菌液与等体积60%无菌甘油混合,分装于冻存管, -80 ℃保存。
1.3.2 乳酸菌生理特性及耐受性测定
生长曲线测定:将活化菌液按1%(体积分数)接种至MRS 液体培养基,每2 h 测定OD600 值,记录并绘制生长曲线。
酸碱耐受性:将活化菌液按1%(体积分数)至不同pH 的MRS 液体培养基(pH 值分别为:2.0、3. 0、4.0、5.0、6.0、7.0、8.0),37 ℃培养24 h 测定OD600值。
胆盐耐受性:将牛胆盐按照不同质量浓度(3、6、9、12、15 g/L)加入MRS 液体培养基,105 ℃、15 min灭菌后接种1%菌液(体积分数),37 ℃培养24 h 测定OD600值。
高糖、高盐耐受性:配制含不同质量浓度NaCl(40、60、80、100、120 g/L)和葡萄糖(200、250、300、350、400 g/L)的MRS 培养基,按接种量1%接种菌液,37 ℃培养24 h 测定OD600值。
温度耐受性:将活化菌液按1% 接种量接种至MRS 液体培养基,分别在20、25、30、37、40 ℃条件下培养24 h,测定OD600值。
1.3.3 乳酸菌代谢活性测定
产酸能力:将活化菌液按1%接种量接种于MRS液体培养基,37 ℃培养24 h;培养液用0.05 mol/L 的NaOH 滴定,测定总酸含量(参照GB 12456—2021《食品安全国家标准食品中总酸的测定》)。
产蛋白酶活性:参考文献[14]方法。 取20 mL 菌液,8 000 r/min 离心10 min,收集上清液为粗酶液。设置空白对照。 分别取1 mL 粗酶液,向对照管立即加入2 mL 0.4 mol/L 三氯乙酸(trichloroacetic acid,TCA)终止反应。 向另一管加入1 mL 20 g/L 酪蛋白溶液(pH 7.0),40 ℃反应10 min 后加入2 mL TCA 终止。 向对照管补加1 mL 酪蛋白溶液,继续水浴20 min。离心后取上清液1 mL,依次加入5 mL 0.4 mol/L 碳酸钠溶液和1 mL 稀释福林酚试剂,显色20 min 后于680 nm 测吸光度。 按公式(1)计算酶活力:
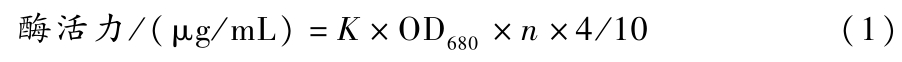
式中:K,标准曲线斜率倒数;n,稀释倍数;4,反应液总体积与测定体积比;10,反应时间,min。
1.3.4 乳酸菌发酵天麻及指标测定
按照料液比1∶10(g∶mL)制备天麻培养液,依次加入纤维素酶(3.0 g/L)、淀粉酶(3.0 g/L)、糖化酶(3.0 g/L),分别于55、75、60 ℃酶解60 min,105 ℃灭菌20 min。 按照5%(体积分数)接种活化菌液,37 ℃、120 r/min 发酵48 h。 对照组接种等体积无菌水。
发酵液经冷冻干燥(预冻-80 ℃,升华35 ℃,真空度1 Pa,隔板温度20 ℃)。 取冻干粉2.00 g,加入20 mL 80%甲醇,40 ℃超声提取30 min,过滤,重复两次,合并滤液并定容至50 mL,4 ℃保存备用。
粗多糖测定:参照张双奇等[15]方法并稍作修改。取冻干样品5 g,用80%乙醇脱脂,离心烘干。 取1 g脱脂样品,按料液比1 ∶40(g ∶mL) 加水超声提取45 min,离心收集上清液,重复2 次。 合并上清液浓缩至原体积25%,加入4 倍体积95%乙醇,4 ℃过夜沉淀。 离心后沉淀溶解并定容至50 mL。 采用蒽酮-硫酸法[16]测定,于625 nm 测吸光度。 标准曲线为y =4.456x +0.177 3,R2 =0.992 4。 计算见公式(2):
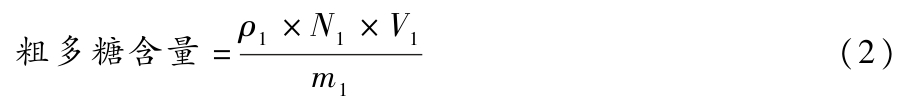
式中:ρ1,样液多糖质量浓度,μg/mL;N1,稀释倍数;V1,样液总体积,mL;m1,称取样品质量,g。
发酵天麻提取液中6 种多酚类化合物测定:参照文献方法[17]并稍作修改,取上述得到的提取液1 mL,经0.22 μm 有机滤膜过滤后进样。 分别配制天麻素、对羟基苯甲醇、对羟基苯甲醛、柠檬酸酯E、柠檬酸酯B、巴利苷A 的标准溶液(2 mg/mL),梯度稀释得系列工作液(10 ~200 μg/mL)。 标准溶液的线性关系如表1 所示。 采用HPLC 测定,色谱柱:Poroshell 120 PFP(4.6 mm ×100 mm,2.7 μm);DAD 检测器,波长220 nm;柱温35 ℃;进样量2 μL;流速0.8 mL/min;流动相:A 为0.1%磷酸水溶液,B 为乙腈。 梯度洗脱程序:0 ~5 min,2% ~5% B;5 ~10 min,5% ~10%B;10 ~20 min,10% ~25% B;20 ~25 min,25% ~80% B。 以外标法定量。
表1 活性化合物的线性关系(n =6)
Table 1 Linear relationship of active compounds (n =6)
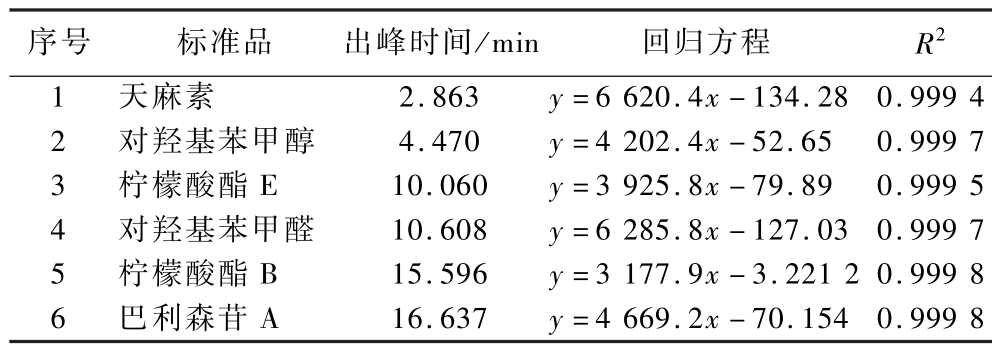
序号标准品出峰时间/min回归方程R2 1天麻素2.863y =6 620.4x -134.28 0.999 4 2对羟基苯甲醇4.470y =4 202.4x -52.65 0.999 7 3柠檬酸酯E10.060y =3 925.8x -79.89 0.999 5 4对羟基苯甲醛10.608y =6 285.8x -127.03 0.999 7 5柠檬酸酯B15.596y =3 177.9x -3.221 2 0.999 8 6巴利森苷A16.637y =4 669.2x -70.154 0.999 8
总多酚(total polyphenols,TPC)和总黄酮(total flavonoids,TFC)的测定:参照文献方法[18],并做修改。 总多酚:使用超纯水对天麻提取液进行适当稀释,取稀释液20 μL,加入20 μL 福林酚试剂,混匀静置5 min,加入160 μL 质量分数为5% Na2 CO3,避光反应60 min,于765 nm 测吸光度。 以没食子酸为标准品,标准曲线y =0.078 5x +0.088 6,R2 =0.991 2。按公式(3)计算:
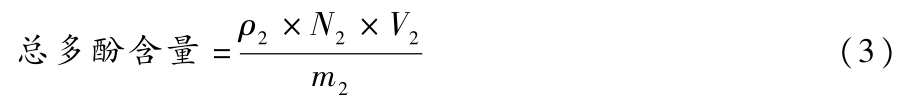
总黄酮:取稀释液20 μL,加入15 μL 质量分数为5% NaNO2,反应6 min,加15 μL 质量分数为10%AlCl3,静置5 min, 加100 μL 1 mol/L NaOH, 于510 nm测吸光度。 以芦丁为标准品,标准曲线为y =0.596 8x +0.042 9,R2 =0.990 3。 按公式(4)计算:
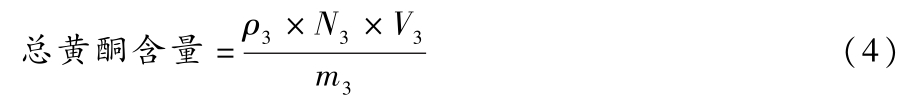
式中:ρ2、ρ3分别为总多酚、总黄酮质量浓度,μg/mL;N2、N3为稀释倍数;V2、V3,提取液体积,mL;m2、m3,样品质量,g。
DPPH 自由基清除能力测定:参照文献方法[19]并稍作修改。 配制质量浓度为128.50 μg/mL DPPH溶液(体积分数80%甲醇溶液为溶剂),取100 μL 待测液(超纯水稀释提取液至0.25、0.5、1.0、5.0、7.5、10.0、20.0、50.0、100.0 mg/mL),加入100 μL DPPH溶液混匀,静止30 min,于波长517 nm 处测定吸光度。 以上述甲醇溶液为空白,测定吸光度A0,以Trolox 为阳性对照。 清除率按公式(5)计算:
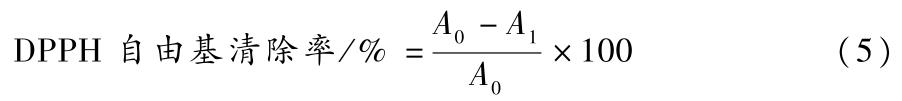
式中:A0,空白组吸光度;A1,样品组或阳性组的吸光度。
ABTS 阳离子自由基清除能力测定:参照文献方法[19]并稍作修改,7 mmol/L ABTS 溶液和2.45 mmol/L K2S2O8等体积混合,常温避光16 h,用体积分数80%的甲醇溶液稀释至734 nm 吸光度为0.70 ±0.02,得ABTS 工作液。 取40 μL 待测液(超纯水稀释提取液至0.25、0.5、1.0、5.0、7.5、10.0、20.0、50.0 mg/mL),加入160 μL ABTS 工作液混匀,静止6 min,于波长734 nm 处测定吸光度。 用体积分数80%的甲醇为空白,测定吸光度A2,以Trolox 为阳性对照品。 清除率按公式(6)计算:
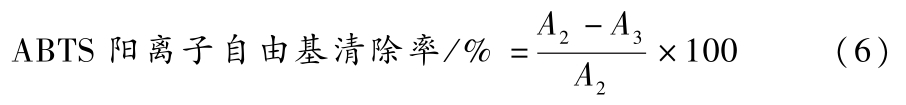
式中:A2,空白组吸光度;A3,样品组或阳性组的吸光度。
α-葡萄糖苷酶抑制活性测定:参照文献方法[8],取40 μL 待测液(超纯水稀释提取液至0. 25、0. 5、1.0、7. 5、10. 0、25. 0、50. 0、80. 0、100. 0 mg/mL)和30 μL α-葡萄糖苷酶溶液(0.5 U/mL)混合,37 ℃孵育10 min,加入30 μL 5 mmol/L 的对硝基苯-β-D-半乳糖苷(p-nitrophenyl-β-D-galactopyranoside, pNPG,0.1 mol/L pH 6.8 磷酸盐缓冲溶液为溶剂),混匀,继续反应30 min,加入100 μL 的1 mol/L Na2CO3溶液终止,在波长405 nm 处测吸光度Aa,以阿卡波糖为阳性对照品。 α-葡萄糖苷酶活性抑制率按公式(7)计算:
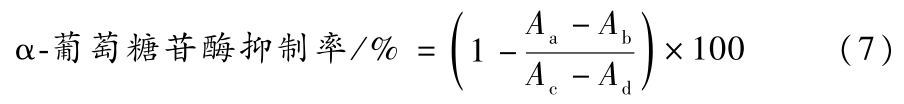
式中:Aa,样品和酶溶液吸光度;Ab,磷酸盐缓冲液替代样品的吸光度;Ac,酶液和磷酸盐缓冲液的吸光度;Ad,磷酸盐缓冲液替代酶的吸光度。
1.4 数据处理
所有试验均独立重复3 次,实验结果以“平均值±标准差”表示。 使用Excel 2016 进行数据整理和初步计算。 采用SPSS Statistics 27 软件进行单因素方差分析(one-way analysis of variance,one-way ANOVA)和组间显著性检验,显著性水平设为P <0. 05。 使用GraphPad Prism 10.1.2 软件进行图形绘制。
2 结果与分析
2.1 乳酸菌筛选及鉴定
从泡菜中分离得到5 株乳酸菌,其菌落形态、细胞形态符合一般乳酸菌特征(图1),经BLAST 程序进行同源性比对分析,分别鉴定为植物乳植杆菌(Lactipiantibacillus plantarum R2)、短促生乳杆菌(Levilactobacillus brevis R4)、康帕尼乳杆菌(Companilactobacillus alimentarius R5)、发酵粘病乳杆菌(Limosilactobacillus fermentum RB)、戊糖片球菌(Pediococcus pentosaceus RC)。
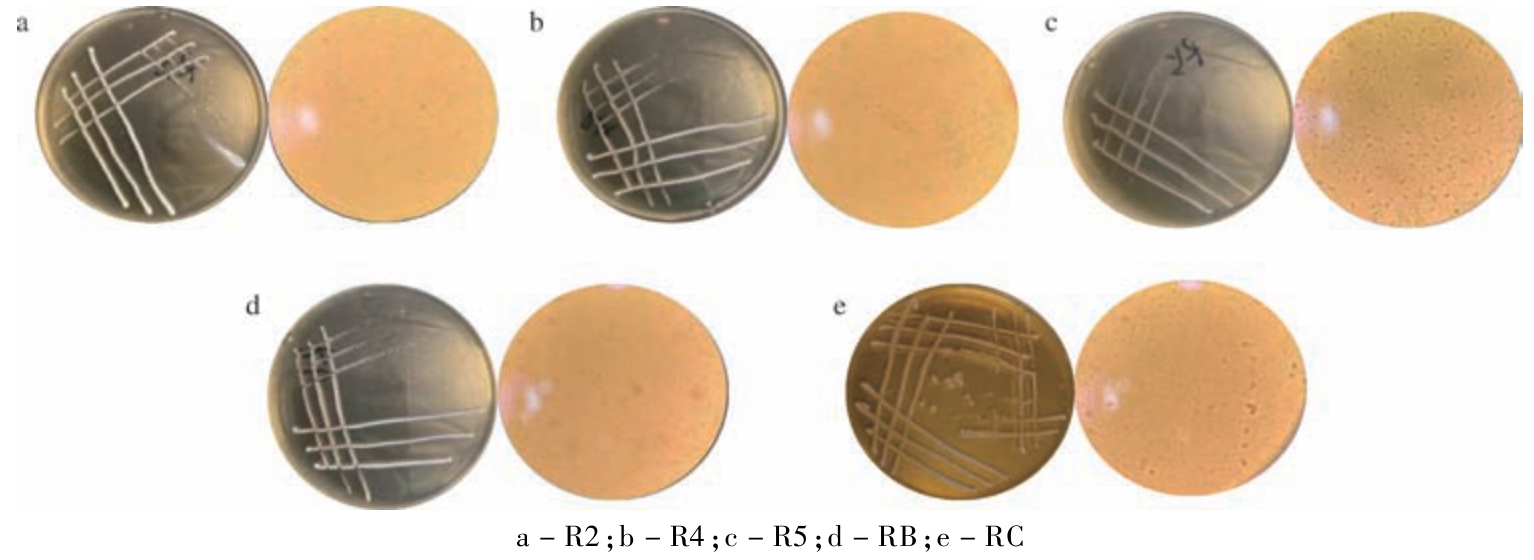
图1 乳酸菌菌落和细胞镜检图
Fig.1 Colony and cell microscopic images of lactic acid bacteria
2.2 生长曲线测定
对5 株乳酸菌在MRS 液体培养基中36 h 内的生长曲线分析(图2),所有菌株均呈现出典型的微生物生长动态。 RB 与RC 表现出快速生长的特性,迟缓期较短(约2 h),显示其较强的初期适应性与快速繁殖能力。 相比之下,R2 和R4 的迟缓期较长(约10 h),之后逐渐进入对数期,生物量持续积累,在20 h 后达到稳定,两者表现出较高的最终生物量,提示其具有较好的后期代谢潜力。 R5 生长相对较缓,整个培养过程中生物量积累最低(最高OD600 值约1.311),生长活力较弱。 乳酸菌的生长速率与其代谢产物积累密切相关,快速生长菌株往往产酸速度快,而缓慢生长菌株可能更利于次级代谢产物的积累[20]。综上,RB 和RC 适合作为快速启动发酵的菌株,而R2 和R4 在长时发酵中可能更有利于功能产物的积累,为后续天麻发酵中菌株的选择与工艺优化提供了依据。
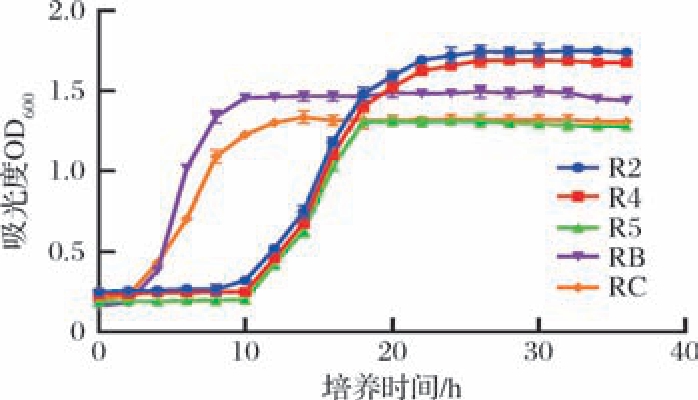
图2 乳酸菌生长曲线
Fig.2 Growth curves of lactic acid bacteria
2.3 酸碱耐受性测定
菌株在不同pH 条件下的生长情况分析如图3所示,pH 值对5 株乳酸菌的生长均具有显著影响,而微生物对酸碱的耐受性与其细胞膜稳定性、质子泵活性及细胞内pH 维持机制密切相关[21]。 在强酸性环境(pH 2 ~3)中,所有菌株生长均受到明显抑制,OD600值均低于0.55,表明其在此条件下适应能力有限。 随着pH 值升高至4 ~8,各菌株生长逐渐恢复并趋于稳定。 其中,R2 与R4 表现出较宽的pH 适应范围,并在pH 值为6 时达到生长峰值,说明其对弱酸至中性环境具有较强的耐受性。 其次为RB、RC 及R5。
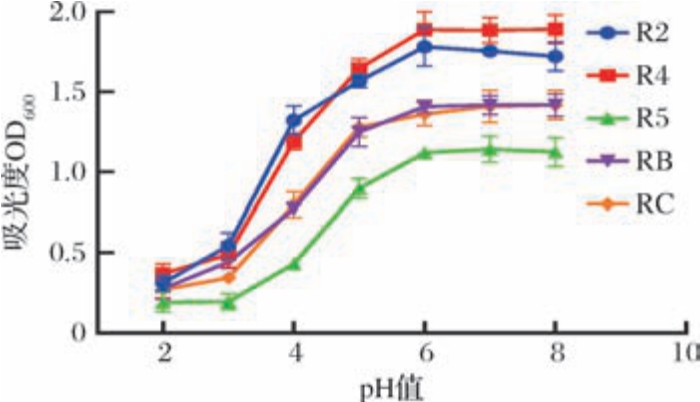
图3 乳酸菌酸碱耐受
Fig.3 Acid and alkali tolerance of lactic acid bacteria
2.4 胆盐耐受性测定
胆盐耐受性测定结果(图4)显示,在低胆盐浓度(3.0 ~6.0 g/L)下,各菌株生长良好;随着胆盐浓度升高,菌株间耐受性差异显著。 R2 与R4 表现出较强的胆盐耐受性,在15 g/L 胆盐环境下仍保持较高生物量;RC 耐受性中等;RB 与R5 耐受性较弱。 胆盐耐受性是评价乳酸菌胃肠存活潜力的重要指标,R2 和R4 的高胆盐耐受性可能源于其细胞膜中较高的饱和脂肪酸比例,增强膜稳定性,或表达胆盐水解酶(bile salt hydrolase,BSH)[22]。 由此,R2 和R4 具备优良的胆盐耐受性,有望在模拟肠道高胆盐环境中保持活性,这对于开发具有胃肠存活潜力的功能性发酵菌剂具有重要意义。
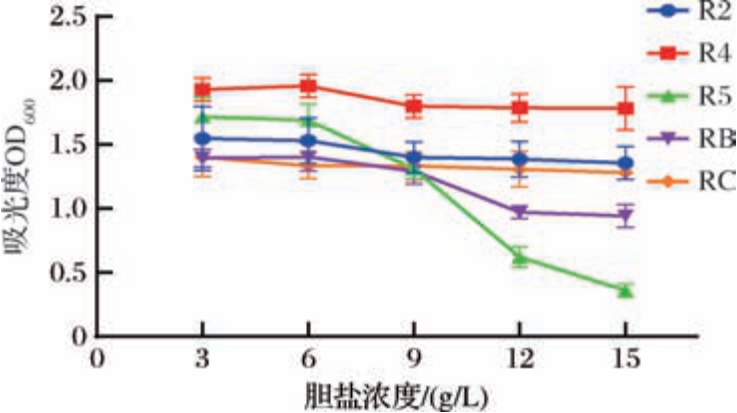
图4 乳酸菌胆盐耐受
Fig.4 Bile salt tolerance of lactic acid bacteria
2.5 高糖、高盐耐受性测定
高糖和高盐环境均会对细胞造成渗透压胁迫,影响水分活度和营养吸收。 在高糖与高盐耐受性测定中(图5),R2 对高糖和高盐均表现出最佳耐受性;RC 在中等盐浓度下表现较好;R5 和RB 对高糖、高盐较为敏感。 R2 的强耐受性可能与其能积累相容性溶质以维持胞内渗透压平衡有关,部分乳酸菌可通过调节细胞膜脂质组成来应对高渗压力[23]。 RC 在中等盐浓度下仍能生长,表明其具有一定的渗透调节能力,但在极端条件下可能受到抑制。 R5 和RB 的敏感性提示其渗透调节系统较弱,不适合应用于高渗透压食品发酵体系。
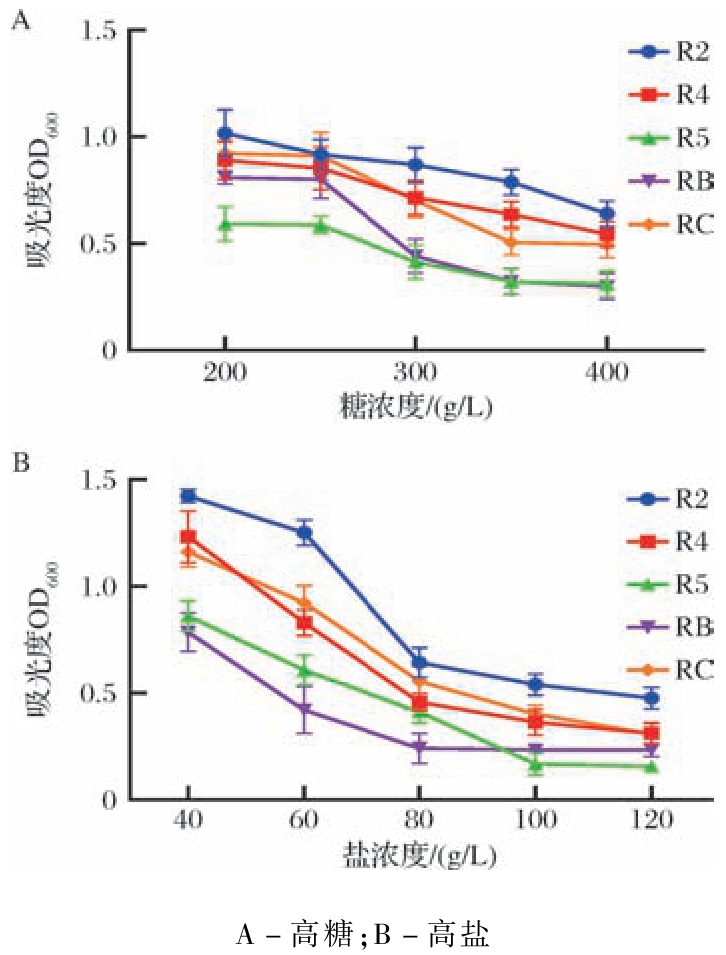
图5 乳酸菌高糖、高盐耐受
Fig.5 High sugar and high salt tolerance of lactic acid bacteria
2.6 温度耐受性测定
温度是影响微生物酶活性和膜流动性的关键因素。 温度耐受性测定结果(图6)显示,R2 和R4 具有较宽的温度适应范围(20 ~45 ℃),尤其在30 ~37 ℃条件下生长最佳;RC 在20 ~37 ℃内生长稳定,说明其代谢系统在该温度区间内效率较高;RB 在30 ~45 ℃仍保持一定生长能力;R5 对温度变化较为敏感,可能缺乏温度应激响应机制,限制了其在实际发酵中的适用性。
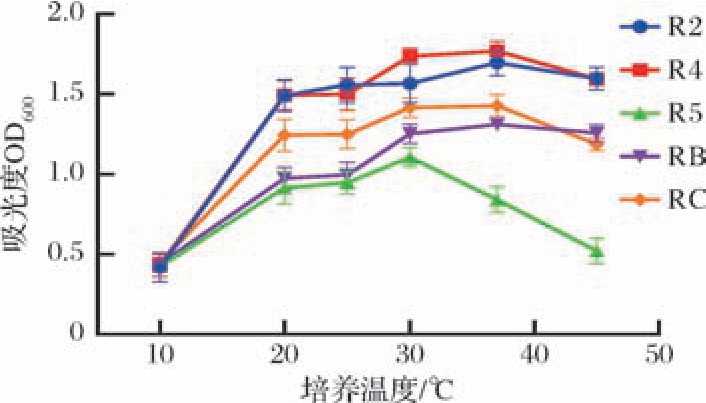
图6 乳酸菌温度耐受
Fig.6 Temperature tolerance of lactic acid bacteria
2.7 产酸能力测定
产酸能力测定结果(图7)表明,R4 产酸能力最强(20.32 g/L),RC 次之(17. 66 g/L),R2 和RB 较高,而R5 最低(9.51 g/L)。 产酸能力直接影响发酵体系的pH 降低速度和防腐效果。 R4 的高产酸能力可能源于其高效的糖酵解途径和乳酸脱氢酶(lactate dehydrogenase,LDH)活性,能快速将丙酮酸转化为乳酸[24]。 结合前期生长特性与耐受性分析,R4 不仅具有较好的胆盐与温度耐受性,其高产酸特性也表明该菌株在发酵过程中可快速降低体系pH,有利于抑制杂菌生长并可能促进天麻基质的酸化与成分转化。
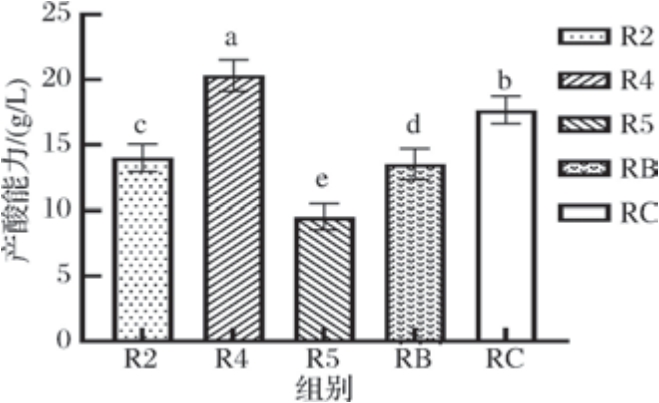
图7 乳酸菌产酸量
Fig.7 Acid production by lactic acid bacteria
注:不同小写字母表示具有显著差异(P <0.05),字母相同代表差异不显著(下同)。
2.8 产蛋白酶活性测定
产蛋白酶活性测定结果(图8)显示,RC 菌株的蛋白酶活性最高(8.10 μg/mL),R2 次之(6.01 μg/mL),R4 居中,RB 与R5 则显著较低。 蛋白酶活性是评价乳酸菌蛋白质水解能力的关键指标,直接关系到其降解基质蛋白、释放游离氨基酸与生物活性肽的效率,对发酵食品的风味形成、营养提升及功能成分转化具有重要作用。 RC 表现出的高蛋白酶活性可能与其基因组中编码多种胞外蛋白酶(如细胞壁相关蛋白酶PrtP)的基因高表达有关。 这类蛋白酶能有效切割蛋白质肽键,促进天麻等植物基质中结合态蛋白质的水解释放,进而增加可溶性氮源、增强发酵体系的呈味潜力与功能多样性[25]。 相比之下,R2 虽蛋白酶活性略低于RC,但仍具备较强的蛋白水解潜力,其酶系组成可能更倾向于特定肽键的选择性水解。 综上,RC 与R2 在蛋白质水解能力方面具有明显优势,有望通过其蛋白酶系统调控天麻发酵过程中含氮成分的转化路径,促进活性肽的生成与释放,为开发具有增强风味与功能特性的天麻发酵制品提供理论与酶学依据。
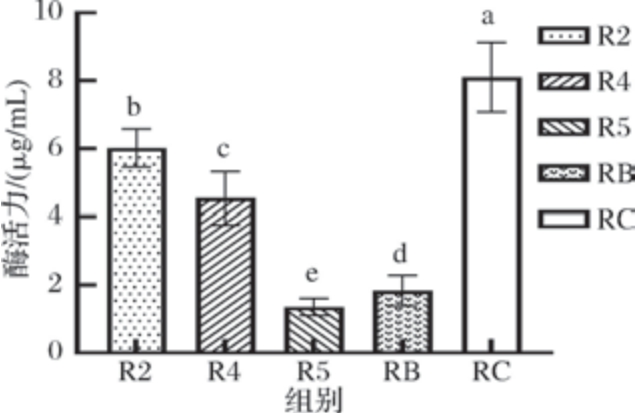
图8 乳酸菌产蛋白酶活性
Fig.8 Protease production activity of lactic acid bacteria
2.9 天麻发酵液指标测定
2.9.1 粗多糖含量
基于前期菌株筛选结果,选取R2、R4 与RC 3 株性能优良的乳酸菌进行天麻发酵,并测定其粗多糖含量变化。 如图9 所示,与未发酵对照组(6.72 mg/g)相比,3 株乳酸菌发酵后均能显著提高天麻中粗多糖的含量,其中R2 发酵组的粗多糖含量最高,达到21.88 mg/g,约为对照组的3.25 倍;RC、R4 组次之,亦显著高于对照组(P <0.05)。 粗多糖含量显著提高,可能是乳酸菌在发酵过程中通过代谢途径合成或修饰多糖,又或是酸化体系及酶解作用改变多糖的溶解性与提取率[26]。
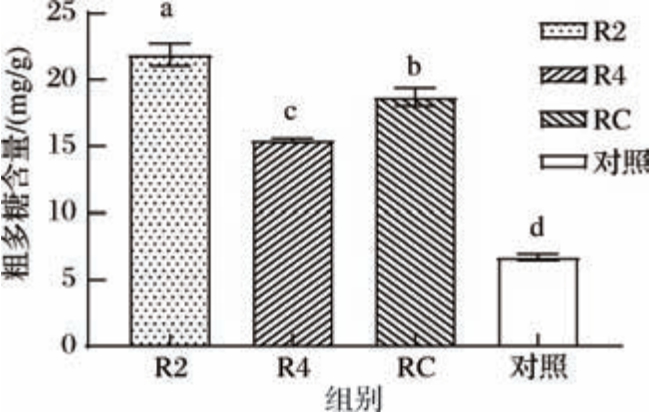
图9 乳酸菌发酵天麻粗多糖含量
Fig.9 Crude polysaccharide content in fermented G.elata by lactic acid bacteria
2.9.2 天麻样品中活性化合物分析
乳酸菌发酵对天麻中多种活性成分的含量具有特异性调控作用(表2)。 RC 发酵组在天麻素和对羟基苯甲醇含量上表现最优(P <0.05),天麻素为酚苷类物质,乳酸菌可能通过β-葡萄糖苷酶将其水解为苷元(对羟基苯甲醇)[27],进而影响其含量与活性。此外,柠檬酸酯E 在各发酵组中均显著提升,而巴利森苷A 在发酵后显著降低,可能被乳酸菌作为碳源部分利用,或通过酶促反应转化为其他代谢物。 这种成分特异性变化反映了乳酸菌代谢途径的多样性,也为通过发酵调控天麻功效成分组成提供了可能。
表2 天麻样品中活性化合物含量单位:mg/g
Table 2 Content of active compounds in G.elata samples
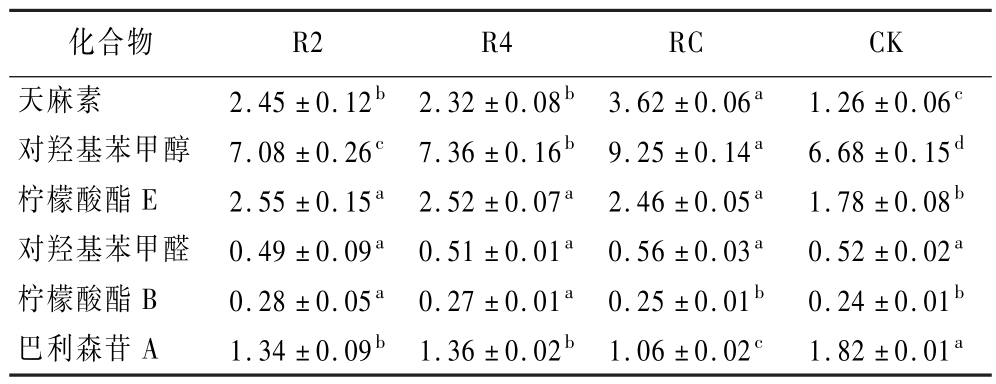
化合物R2R4RCCK天麻素2.45 ±0.12b 2.32 ±0.08b 3.62 ±0.06a1.26 ±0.06c对羟基苯甲醇 7.08 ±0.26c 7.36 ±0.16b 9.25 ±0.14a6.68 ±0.15d柠檬酸酯E2.55 ±0.15a 2.52 ±0.07a 2.46 ±0.05a1.78 ±0.08b对羟基苯甲醛 0.49 ±0.09a 0.51 ±0.01a 0.56 ±0.03a0.52 ±0.02a柠檬酸酯B0.28 ±0.05a 0.27 ±0.01a 0.25 ±0.01b0.24 ±0.01b巴利森苷A1.34 ±0.09b 1.36 ±0.02b 1.06 ±0.02c1.82 ±0.01a
注:同行不同小写字母表示具有显著性差异(P <0.05),相同小写字母表示差异不显著。
2.9.3 天麻样品中总多酚、总黄酮含量分析
乳酸菌发酵对天麻中总多酚与总黄酮含量的影响如图10 所示。 总多酚含量在发酵后均有不同程度提升,其中RC 组最高(8.44 mg GAE/g),显著高于对照组(6.81 mg GAE/g);R2 组为7.83 mg GAE/g,R4组为7.32 mg GAE/g,两者亦显著高于对照,但低于RC 组。 总黄酮含量呈现相似趋势,RC 组同样最高(2.80 mg GAE/g),其次为R4(2.29 mg GAE/g)和R2(2.10 mg GAE/g),均显著高于对照组(2.00 mg GAE/g)。结果表明,乳酸菌发酵能够显著促进天麻中总多酚与总黄酮的积累,且该促进作用具有菌株特异性,RC在提升这两类活性成分方面表现最为突出,进一步印证了其在天麻功能成分转化中的潜在应用价值。
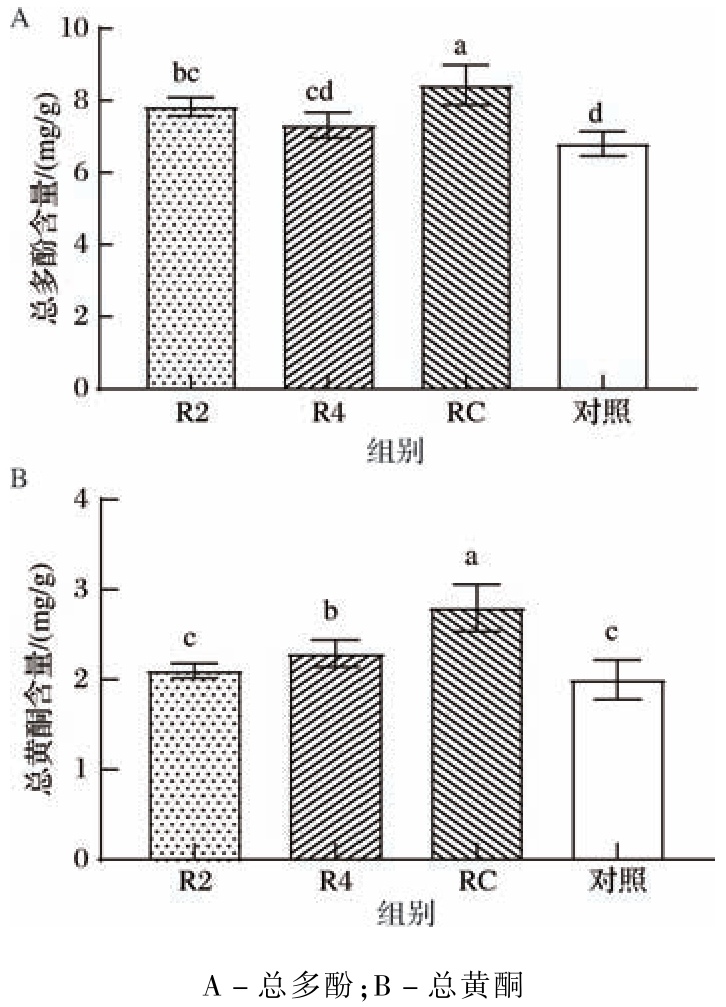
图10 乳酸菌发酵天麻总多酚、总黄酮含量
Fig.10 Total phenolic and total flavonoid contents in fermented G.elata by lactic acid bacteria
2.9.4 天麻样品中抗氧化性分析
基于DPPH 自由基与ABTS 阳离子自由基清除实验的IC50数据(图11),乳酸菌发酵对天麻抗氧化活性的调控呈现显著的菌株特异性与机制差异性。在DPPH 自由基清除体系中,R2 发酵组的IC50 值最低(3. 74 mg/mL),显著低于RC(6. 57 mg/mL)、R4(10.85 mg/mL)及对照组(11.52 mg/mL),表明R2能最有效地提升天麻清除DPPH 自由基的能力,其作用可能与其发酵后粗多糖含量显著升高密切相关[28]。 在ABTS 阳离子自由基清除体系中,RC 表现出最优异的活性,IC50 值仅为8.48 mg/mL,明显低于R2(14. 09 mg/mL)、R4(13. 55 mg/mL) 和对照组(16.04 mg/mL),说明RC 发酵更能增强天麻的电子转移抗氧化能力,这可能源于其发酵后总多酚与总黄酮的积累。 值得注意的是,R4 在2 个体系中IC50值均与对照组接近或略优,但未表现出显著优势,提示尽管该菌株具备良好的生理耐受性及产酸能力,但其发酵并未明显增强天麻的体外抗氧化活性。 这一结果为基于目标抗氧化机制筛选适用发酵菌株、开发功能导向的天麻发酵产品提供了明确依据。
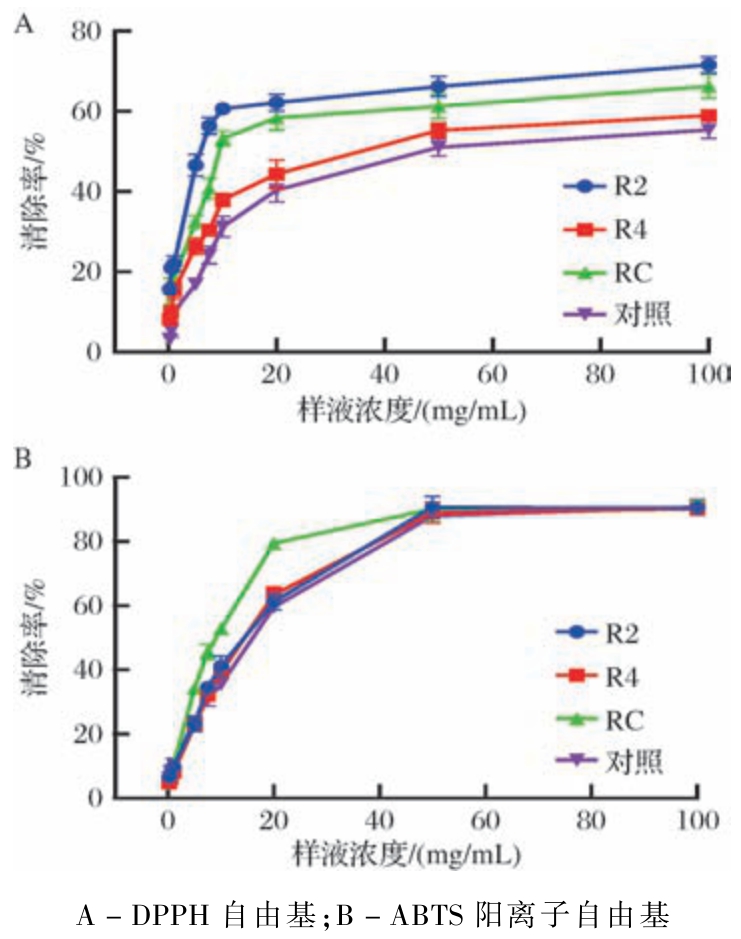
图11 乳酸菌发酵天麻DPPH 自由基、ABTS 阳离子自由基清除能力
Fig.11 DPPH free radical and ABTS cationic radical scavenging abilities of fermented G.elata by lactic acid bacteria
2.9.5 α-葡萄糖苷酶抑制能力分析
乳酸菌发酵对天麻α-葡萄糖苷酶抑制能力的影响如图12 所示,其结果呈现明显的浓度依赖性与菌株特异性。 随着发酵液质量浓度升高(0.1 ~100 mg/mL),所有组别的抑制率均逐渐增强,表明发酵天麻提取物具有良好的α-葡萄糖苷酶抑制潜力。 结合α-葡萄糖苷酶的IC50值,RC 发酵组的IC50 值最低,仅为1.55 mg/mL,显著低于R2(3.56 mg/mL)、R4(3.78 mg/mL)及对照组(6.62 mg/mL),抑制效率最为突出。 这一结果与RC 在提升总多酚、总黄酮及部分活性成分(如天麻素、对羟基苯甲醇)方面的表现相一致,提示其发酵可能通过促进多酚类与黄酮类物质的积累,协同增强了对α-葡萄糖苷酶的抑制能力。 这为其在天麻降血糖功能性食品开发中的优先应用提供了关键数据支持。
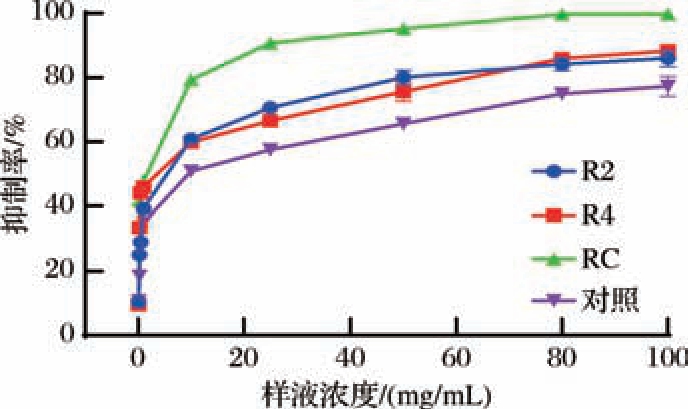
图12 乳酸菌发酵天麻α-葡萄糖苷酶抑制能力
Fig.12 α-Glucosidase inhibitory ability of fermented G.elata by lactic acid bacteria
3 结论
本研究从泡菜中筛选出5 株乳酸菌,并系统评价了其生理生化特性。 R2、R4 和RC 3 株菌在耐酸、耐胆盐、产酸及产酶等方面表现优良,具备作为功能发酵剂的潜力。 将其应用于天麻发酵后,显著提升了天麻中粗多糖、总多酚、总黄酮及部分酚类化合物的含量,并增强了其抗氧化与α-葡萄糖苷酶抑制活性。不同菌株对天麻成分的调控具有特异性:R2 更利于粗多糖积累与DPPH 自由基清除;RC 则在提升天麻素、多酚类物质、ABTS 阳离子自由基清除及α-葡萄糖苷酶抑制活性方面表现突出。
乳酸菌发酵是一种有效提升天麻功能品质的生物加工策略,菌株的选择对发酵产物的组成与活性具有决定性影响。 RC 菌株因其综合性能优异,尤其适用于开发具有抗氧化与降血糖功能的天麻发酵产品。然而,本研究仍存在一定的局限性,未来可在以下3方面进行深化探索:a)本研究虽观察到RC 菌株在提升多酚、黄酮及α-葡萄糖苷酶抑制活性方面表现突出,但其背后的代谢调控机制尚不明确,后续可结合代谢组学与转录组学方法,解析乳酸菌发酵过程中关键酶(如β-葡萄糖苷酶、蛋白酶)的表达与活性变化,阐明成分转化的分子途径;b)发酵工艺参数(如温度、时间、接种量、pH)对产物组成与活性的影响尚未系统优化,未来可采用响应面法或正交试验设计,建立发酵工艺与功能指标之间的量化关系,为实现精准调控提供依据;c)本研究主要基于体外化学与酶学评价,其体内生理功能(如降血糖、抗氧化)及安全性尚未验证,后续需开展动物实验或细胞模型研究,进一步确认发酵天麻的实际功效与适用性。 综上,本研究为开发功能导向的天麻发酵产品提供了理论依据与菌种资源,也为其他药食同源植物或功能性食品发酵提供数据支撑,后续研究应围绕机制解析、工艺优化与功能验证3 个维度展开,推动该技术向产业化应用迈进。
[1] 赵晨雨, 朱立斌, 朱丹, 等. 乳酸菌发酵对蔓越莓汁主要成分及抗氧化活性的影响[J]. 食品工业科技,2025,46(21):187 -195.Zhao C Y, Zhu L B, Zhu D, et al. Effect of lactic acid bacteria fermentation on the main components and antioxidant activity of cranberry juice[J]. Science and Technology of Food Industry,2025,46(21):187 -195.
[2] Gao H, Wen J J, Hu J L, et al. Polysaccharide from fermented Momordica charantia L. with Lactobacillus plantarum NCU116 ameliorates type 2 diabetes in rats[J]. Carbohydrate Polymers, 2018,201:624 -633.
[3] Ma J, Wang J R, Wan Y J, et al. Probiotic-fermented traditional Chinese herbal medicine, a promising approach to maintaining the intestinal microecology[J]. Journal of Ethnopharmacology, 2025,337:118815.
[4] 钟秋, 李生帅, 蒲树燕, 等. 复合乳酸菌剂发酵四川泡菜过程中细菌群落变化及风味特征分析[J]. 西华大学学报(自然科学版), 2025, 44(4):19 -31.Zhong Q, Li S S, Pu S Y, et al. Analysis of bacterial community dynamics and flavor characteristics in Sichuan Paocai fermented with mixed starter culture[J]. Journal of Xihua University (Natural Science Edition), 2025, 44(4):19 -31.
[5] Wang C, Zhang Q, He L P, et al. Determination of the microbial communities of Guizhou Suantang, a traditional Chinese fermented sour soup, and correlation between the identified microorganisms and volatile compounds[J]. Food Research International, 2020,138(Pt B):109820.
[6] 洋汶, 徐嘉悦, 杨沛树, 等. 郫县豆瓣发酵微生物与风味物质的研究进展[J]. 食品工业科技, 2025, 46(11):21 -31.Yang W, Xu J Y, Yang P S, et al. Research progress on fermentation microorganisms and flavor compounds in Pixian broad bean paste[J]. Science and Technology of Food Industry, 2025, 46(11):21 -31.
[7] 吴思颖, 吴学菊, 黄富荣, 等. 天麻主要活性成分功效及加工稳定性研究进展[J]. 食品科学, 2025, 46(22):363 -371.Wu S Y, Wu X J, Huang F R, et al. Research progress on the efficacy and processing stability of the major active ingredients in Gastrodia elata bl[J]. Food Science, 2025, 46(22):363 -371.
[8] 石新卫, 王璐, 张胜, 等. 天麻的化学成分及其抗氧化和抑制α-葡萄糖苷酶活性研究[J]. 中草药, 2024, 55(19):6474 -6481.Shi X W, Wang L, Zhang S, et al. Chemical constituents from Gastrodia elata and their antioxidant and α-glucosidase inhibitory activities[J]. Chinese Traditional and Herbal Drugs, 2024, 55(19):6474 -6481.
[9] Huang S C, Huang H C, Liao W L, et al. Neuroprotective effects of Gastrodia elata Blume on promoting M2 microglial polarization by inhibiting JNK/TLR4/T3JAM/NF-κB signaling after transient ischemic stroke in rats [ J]. Frontiers in Pharmacology, 2024,15:1469602.
[10] Yang X, Li L L, Yan Y F, et al. Investigation of the pharmacodynamic components of Gastrodia elata blume for treatment of type 2 diabetes mellitus through HPLC, bioactivity, network pharmacology and molecular docking[J]. International Journal of Molecular Sciences, 2024, 25(19):10498.
[11] Li Y Y, Ten M M Z, Zwe Y H, et al. Lactiplantibacillus plantarum 299v as starter culture suppresses Enterobacteriaceae more efficiently than spontaneous fermentation of carrots[J]. Food Microbiology, 2022, 103:103952.
[12] Yilmaz B, Bangar S P, Echegaray N, et al. The impacts of Lactiplantibacillus plantarum on the functional properties of fermented foods:A review of current knowledge[J]. Microorganisms, 2022,10(4):826.
[13] Zhang Y Z, Kaushik N, Park P, et al. Pediococcus pentosaceus in fermented foods:Probiotic properties and a multi-omics framework for applications[J]. Trends in Food Science & Technology,2025,163:105187.
[14] 李丹阳, 李宇辉, 高云云, 等. 新疆哈萨克族风干肉中产蛋白酶乳酸菌的筛选及酶学特性研究[J]. 食品与发酵工业,2020, 46(9):57 -63.Li D Y, Li Y H, Gao Y Y, et al. Screening of protease-producing lactic acid bacteria from Xinjiang Kazakh air-dried meat and their enzymatic characteristics[J]. Food and Fermentation Industries,2020, 46(9):57 -63.
[15] 张双奇, 刘琳, 何念武, 等. 超声辅助提取陕产天麻多糖的工艺优化及抗氧化活性研究[J]. 中国农学通报, 2021, 37(9):131 -136.Zhang S Q, Liu L, He N W, et al. Gastrodia elata polysaccharide from Shaanxi by ultrasound-assisted hot water extraction:Process optimization and antioxidant activity[J]. Chinese Agricultural Science Bulletin, 2021, 37(9):131 -136.
[16] 胡德分, 刘金美, 李凤娇, 等. 蒽酮-硫酸法测定乌天麻多糖含量的条件优化[J]. 云南民族大学学报(自然科学版), 2023,32(6):687 -694.Hu D F, Liu J M, Li F J, et al. Determination and optimization of the polysaccharide content of Gastrodia Elata Bl. f. glauca by anthrone-sulfuric acid methods[J]. Journal of Yunnan Minzu University (Natural Sciences Edition), 2023, 32(6):687 -694.
[17] 陈琛, 蔺蓓蓓, 苏鹏超, 等. 不同产地红天麻多酚组成及体外抗氧化活性研究[J]. 西北农林科技大学学报(自然科学版),2021, 49(12):144 -154.Chen C, Lin B B, Su P C, et al. Phenolic compositions and in vitro antioxidant activities of Gastrodia elata Bl. F. Elata from different habitats in China[J]. Journal of Northwest A&F University(Natural Science Edition), 2021, 49(12):144 -154.
[18] Xu W X,Pei Y S,Tian J H,et al. Effects of different drying methods on sensory qualities and aroma compounds of finger citron (Citrus medica L. var. Sarcodactylis Swingle) slices[J]. Journal of Food Measurement and Characterization,2021,15(5):4465 -4474.
[19] 温启华, 陆逸昊, 杨露芳, 等. 硒化天麻多糖的制备、结构表征及其抗氧化活性评价[J]. 食品工业科技, 2024, 45(3):18 -30.Wen Q H, Lu Y H, Yang L F, et al. Preparation, structure characterization and antioxidant activity evaluation of selenized Gastrodia elata polysaccharides[J]. Science and Technology of Food Industry, 2024, 45(3):18 -30.
[20] Gänzle M G. Lactic metabolism revisited:Metabolism of lactic acid bacteria in food fermentations and food spoilage[J]. Current Opinion in Food Science, 2015, 2:106 -117.
[21] Cotter P D, Hill C. Surviving the acid test:Responses of grampositive bacteria to low pH[J]. Microbiology and Molecular Biology Reviews, 2003, 67(3):429 -453, tableofcontents.
[22] 段亮亮, 张蒙, 冯洁, 等. 乳酸菌胆盐水解酶和共轭脂肪酸产生及对宿主脂代谢影响的研究进展[J]. 微生物学通报,2022, 49(9):3890 -3905.Duan L L, Zhang M, Feng J, et al. Production of bile salt hydrolase and conjugated fatty acids by lactic acid bacteria and their effects on host lipid metabolism:A review[J]. Microbiology China, 2022, 49(9):3890 -3905.
[23] 陈宁, 吴磊, 谢新强, 等. 乳酸菌在不同胁迫下应激反应及高活性保护机制研究进展[J]. 微生物学报,2025,65(2):421 -436.Chen N, Wu L, Xie X Q, et al. Research progress in responses and high activity protection mechanisms of lactic acid bacteria under different stresses[J]. Acta Microbiologica Sinica, 2025, 65(2):421 -436.
[24] Tsuji A, Okada S, Hols P, et al. Metabolic engineering of Lactobacillus plantarum for succinic acid production through activation of the reductive branch of the tricarboxylic acid cycle[J]. Enzyme and Microbial Technology, 2013, 53(2):97 -103.
[25] Vera-Pingitore E, Jimenez M E, Dallagnol A, et al. Screening and characterization of potential probiotic and starter bacteria for plant fermentations[J]. LWT - Food Science and Technology, 2016,71:288 -294.
[26] Zhang J, Xiao Y, Wang H C, et al. Lactic acid bacteria-derived exopolysaccharide:Formation, immunomodulatory ability, health effects, and structure-function relationship [ J]. Microbiological Research, 2023, 274:127432.
[27] 覃超, 唐富豪, 滕建文, 等. 产β-葡萄糖苷酶乳酸菌发酵对百香果皮多酚含量和功能活性的影响[J]. 食品与发酵工业,2023, 49(8):230 -236.Qin C, Tang F H, Teng J W, et al. Effect of β-glucosidase producing lactic acid bacteria fermentation on polyphenol content and functional activity of passion fruit peel[J]. Food and Fermentation Industries, 2023, 49(8):230 -236.
[28] 陈琛, 李鑫鑫, 徐尤美, 等. 天麻多糖的分离纯化与抗氧化活性研究[J]. 中国临床药理学杂志, 2018,34(18):2203 -2206.Chen C, Li X X, Xu Y M, et al. Extraction, purification and antioxidant activity of polysaccharides from Gastrodia elata B1[J].The Chinese Journal of Clinical Pharmacology, 2018, 34(18):2203 -2206.