异麦芽酮糖(isomaltulose,IMO)是由葡萄糖和果糖以α-1,6 糖苷键连接而成的功能性二糖,具有甜味纯正、低致龋性和低血糖生成指数(glycemic index,GI)等特点[1]。 由于其在人体消化过程中水解速率较蔗糖缓慢,可实现能量的持续释放,因此,其在功能食品、运动营养食品及特殊医学用途配方食品领域具有广泛应用。 此外,IMO 还可作为异麦芽醇等功能性甜味剂的前体,在食品工业和生物制造领域具有重要价值[2]。 目前,IMO 主要通过蔗糖异构酶(sucrose isomerase;EC 5.4.99.11)催化蔗糖分子内糖苷键重排生成[1,3-4]。
已有研究表明,能够应用于IMO 生产的蔗糖异构酶,属于糖苷水解酶家族13(GH13)的第31 亚族,主要存在于分散泛菌(Pantoea dispersa)[4]、大黄欧文氏菌(Erwinia rhapontici)[5]、克雷伯氏菌(Klebsiella spp.)和土生拉乌尔菌(Raoultella terrigena)[6]等革兰氏阴性菌中。 其中,来源于P. dispersa 的蔗糖异构酶具有相对单一的蔗糖异构活性和最高的异麦芽酮糖转化率,是目前异麦芽酮糖酶法制备的主要酶制剂。天然蔗糖异构酶应用于IMO 工业生产时主要面临两方面问题[7-8]:1)热稳定性不足;2)催化效率偏低。大多数天然蔗糖异构酶的最适温度低于30 ℃,且热稳定性较差,其催化效率也处于中等水平。 这些天然特征共同限制了其在高温、长时间生产等工业化场景中的应用效率[9]。
现今,通过定点突变对酶分子精准改造的方式可以从根本上提升酶的性能[10-11]。 在蔗糖异构酶的蛋白质工程研究领域,提升热稳定性是当前的核心目标之一。 B-factor 引导的理性设计、二硫键引入、糖基化位点工程以及计算辅助设计等方法均已被应用于蔗糖异构酶的热稳定性改造[8]。 Sardiña-Peña 等[12]以E.rhapontici NX-5 来源的蔗糖异构酶PalI 为对象,采用B-factor 分析联合糖基化位点引入的综合策略,获得了热稳定性显著改善的突变体,为蔗糖异构酶蛋白质工程提供了系统性的方法参考。 相似地,采用半理性设计策略改造P. dispersa 蔗糖异构酶,结合结构分析与多序列比对,进行了单点突变和遴选,最终获得热稳定性较好提升的突变体V447E/D232P,丰富了蔗糖异构酶分子改造的方法体系[13]。 然而,上述研究大多实现了单一酶学性质的提升,而热稳定性与催化效率的协同优化仍面临本质挑战。
为此,本研究基于底物/产物通道分析的理性设计对P.dispersa 来源的蔗糖异构酶进行改造,以期同时提升其热稳定性和催化效率。 通过整合同源建模、多配体分子对接、通道分析和计算稳定性预测等方法,系统鉴定了位于产物释放瓶颈位点和底物通道入口的关键氨基酸残基,设计并构建了P. dispersa 蔗糖异构酶的新突变体。 在此基础上,对突变体进行了系统的生化表征及模拟工业条件下的性能评估。 研究结果表明,针对底物/产物运输通道关键残基的理性改造可有效协同提升蔗糖异构酶的热稳定性与催化性能,所获得的突变体有望应用于异麦芽酮糖的高效生物制造。
1 材料与方法
1.1 材料与试剂
1.1.1 菌株、质粒及引物
本研究所涉及的菌种毕赤酵母(Pichia pastoris)GS115 和质粒pPIC9K 为Invitrogen 公司产品,大肠杆菌(Escherichia coli)JM109 用于分子克隆宿主,由本实验室保存;含有P. dispersa 蔗糖异构酶编码基因的重组表达质粒pPIC9K-SI,用于编码基因的扩增模板,为本实验室前期构建并保存。 P. pastoris GS115用作本研究目的基因的表达宿主。 定点突变引物由生工生物工程(上海)股份有限公司合成,主要引物序列见表1。
表1 本研究所使用引物
Table 1 Primers used in this study
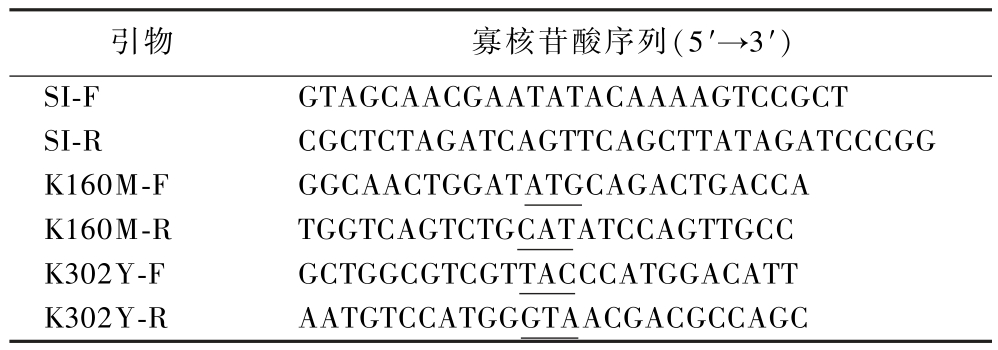
引物寡核苷酸序列(5′→3′)SI-FGTAGCAACGAATATACAAAAGTCCGCT SI-RCGCTCTAGATCAGTTCAGCTTATAGATCCCGG K160M-FGGCAACTGGATATG CAGACTGACCA K160M-RTGGTCAGTCTGCAT ATCCAGTTGCC K302Y-FGCTGGCGTCGTTAC CCATGGACATT K302Y-RAATGTCCATGGGTA ACGACGCCAGC
注:下划线表示突变位点。
1.1.2 试剂与培养基
胰蛋白胨、酵母粉,英国Oxoid 公司;琼脂粉、G418(遗传霉素)、氨苄青霉素、生物素、蔗糖、氯化钠及酵母氮源基础(yeast nitrogen base,YNB)培养基,上海生工生物工程股份有限公司;限制性内切酶(AvrII,SnaB I,Xba I,BamH I)、LA Taq DNA 聚合酶和T4 DNA 连接酶,大连宝生物工程有限公司出品。
LB 培养基(10 g/L 胰蛋白胨,5 g/L 酵母粉,10 g/L氯化钠),用于E. coli 感受态细胞及其转化子的培养,必要时在培养基中添加终质量浓度为100 μg/mL氨苄青霉素。
MD 培养基(minimal extrase medium,20 g/L 葡萄糖,13.4 g/L YNB 培养基,0.4 mg/L 生物素,20 g/L琼脂)用于筛选His+ P.pastoris 转化子。
YPD 培养基(10 g/L 酵母粉,20 g/L 胰蛋白胨,20 g/L 葡萄糖) 补加0. 5 mg/mL 或2. 0 mg/mL G418,用于P. pastoris 转化子抗性筛选。
BMGY 培养基(buffered glycerol-complex medium,10 g/L 酵母粉,20 g/L 胰蛋白胨,13.4 g/L YNB 培养基, 0.4 mg/L 生物素,10 g/L 甘油)和BMMY 培养基(buffered methanol-complex medium,10 g/L 酵母粉,20 g/L 胰蛋白胨,13. 4 g/L YNB 培养基, 0.4 mg/L生物素,5 g/L 甲醇),用于重组酶的表达与制备。
1.2 仪器与设备
ÄKTA purifier UPC 100 蛋白纯化系统和Column SuperdexTM 200 Increase 10/300 GL 凝胶过滤层析柱(用于酶蛋白的纯化),美国GE Healthcare 公司;Agilent 1260 型HPLC 系统,美国Agilent 公司;Shodex RI-201H 检测器,日本Shoko Science 公司;YMC-Pack NH2氨基柱,日本YMC 公司。
1.3 实验方法
1.3.1 蔗糖异构酶分子结构模拟
通过蛋白质建模服务器SWISS-MODEL(https:/ /swissmodel. expasy. org/)进行蔗糖异构酶同源性建模,将相似度最高的晶体结构作为模型去预测构建突变体蔗糖异构酶模型。 使用I-Mutant 2.0[14]网络服务器(https:/ /folding.biofold.org/i-mutant)预测潜在的稳定性增强突变。 利用ClustalW 软件进行氨基酸序列比对,标记活性位点及保守序列[15]。 运用AutoDockTools软件模拟蔗糖异构酶与底物/产物的分子对接情况[16]。 运用分子通道预测软件CAVER[17],分析底物运输通道的详细特征,预测底物和产物通道。 通过PyMOL[18]软件,分析获得可视化的蔗糖异构酶及其突变体结构。
1.3.2 分子克隆及定点突变
本研究所采用的分子克隆操作,均按照实验室常规方法进行,定点突变采用重叠聚合酶链式反应(polymerase chain reaction,PCR)技术完成[19]。 蔗糖异构酶及其突变体基因的扩增产物克隆至pPIC9K载体中,经热激转化法将重组质粒转化入E. coli JM109 中,经确认正确的重组质粒再电转入表达宿主P.pastoris GS115 中,获得重组菌,进行蔗糖异构酶及其突变体的异源表达。
1.3.3 蔗糖异构酶突变体的制备与纯化
毕赤酵母中重组蛋白的表达参照前期建立的方法[20]和毕赤酵母表达手册进行。 将重组菌接种至YPD 液体培养基中,在30 ℃、200 r/min 条件下培养16 h。 按照1%接种量将种子液接种于25 mL BMGY液体培养基中,相同条件下培养16 h。 培养结束后,于8 000 r/min 离心5 min,获得菌体并用2 mL BMMY 液体培养基进行重悬,吸取重悬液加入到50 mL BMMY液体培养基中至终浓度OD600 值为1. 0,于30 ℃和200 r/min 条件下培养120 h。 培养过程中每24 h 补充0.5% (体积分数)终浓度的甲醇。 发酵结束后,8 000 r/min 离心10 min,收集上清液即为粗酶液。
粗酶液经40% ~70% 饱和硫酸铵分级沉淀后,收集沉淀并重新溶解于适当缓冲液中。 进一步在蛋白纯化系统进行重组酶的纯化。 纯化后的酶液经SDS-PAGE(分离胶12%,浓缩胶5%)检验酶分子纯化后的蛋白纯度[19],并采用Bradford 法测定蛋白浓度[21]。
1.3.4 酶活、生化特征及酶促动力学参数测定
蔗糖异构酶及其突变体的活力测定主要条件为:0.5 mL 质量浓度为200 g/L 蔗糖溶液与0.5 mL 酶溶液混合后,在30 ℃和pH 6.0 条件下准确反应20 min;反应结束后反应混合物于沸水浴中孵育10 min 终止反应。 参照GB 1886.182—2016《食品安全国家标准食品添加剂异麦芽酮糖》,以HPLC 方法进行异麦芽酮糖定量分析,流动相为体积分数75%的乙腈,流速1.0 mL/min,柱温35 ℃,检测器温度40 ℃。 蔗糖异构酶活力单位(U)定义为:在30 ℃、pH 6. 0 的条件下,1 mL 蔗糖异构酶每分钟异构1 μmol 蔗糖生成异麦芽酮糖所需酶量。
蔗糖异构酶及其突变体的最适作用温度于25 ~55 ℃测定,最适作用pH 于4.0 ~8.0 测定。 以最高酶活力为100%,计算其他温度或pH 下的相对酶活力。
蔗糖异构酶及其突变体的热稳定性测定方法为:在30、35、40、50 ℃下孵育30、60、90、120、150 min 后,按照上述酶活测定方法,测定其残余酶活力。 其pH稳定性在pH 4.0 ~8.0 的缓冲液中4 ℃下静置1 h 后测定其残余酶活力。 未经处理的样品的酶活力为100%,计算其他条件下的相对酶活。 对各温度下残余酶活力的自然对数值对时间进行线性回归,获得热失活速率常数(kd,min-1),以ln(2)/kd计算酶活半衰期(t1/2)[13,22]。
蔗糖异构酶及其突变体的酶促动力学参数测定,按照规范流程在50 ~300 mmol/L 蔗糖溶液中进行,按照上述方法测定酶活力,以1/V 对1/S 绘制动力学曲线,并计算获得酶的动力学参数Km、Vmax、kcat和kcat/Km。
1.3.5 异麦芽酮糖酶促合成
以600 g/L 蔗糖为底物,加酶量10 U/g 蔗糖,在pH 6.0、30 ~50 ℃条件下,反应16 ~32 h 后,置沸水浴加热10 min 终止反应。 反应过程中定时取样,以前述HPLC 方法进行异麦芽酮糖的定量分析。
2 结果与讨论
2.1 蔗糖异构酶的结构特征解析
以E. rhapontici NX-5 来源蔗糖异构酶晶体结构(PDB ID:4HOW,分辨率1.70 Å)为模板,通过同源建模构建了P. dispersa 蔗糖异构酶(Pd-SI)的三维结构模型(图1-a)。 所获模型的序列同一性为74.19%,GMQE 值为0.92,QMEANDisCo 全局评分为0.88 ±0.05,表明该模型质量良好,可用于后续结构分析。 通过多序列比对结合已报道蔗糖异构酶结构信息的比对分析,确认Pd-SI 的关键功能残基如下:催化三联体由亲核残基Asp206、酸碱催化残基Glu260 及辅助残基Asp334 组成;芳香钳结构由Phe262 和Phe286 构成,负责底物结合口袋的形成与产物特异性调控;异构化核心序列为290 RLDRY294,该保守基序在异麦芽酮糖合成酶中高度保守,对产物特异性的调控具有关键作用。

图1 P.dispersa 蔗糖异构酶的结构特征分析
Fig.1 Structural characterization of sucrose isomerase from P.dispersa
已有研究表明,底物通道在酶-底物结合过程中起到调控底物进入蛋白质内部的门控作用,从而直接影响酶的催化活性[23-25]。 酶促产物若长时间滞留于通道内,会导致产物抑制效应,同样会降低酶的整体催化效率[26]。 针对产物出口通道关键残基的改造,如拓宽通道瓶颈区域或引入有利于产物扩散的残基,可加速产物释放、缓解产物抑制[10]。 可见,底物/产物通道入口/出口区域的氨基酸残基组成可直接影响底物的进入速率与产物释放速率,对其进行定向改造有望有效提升酶的催化性能。 为此,本研究在明确了Pd-SI 的关键功能区域后,进一步对Pd-SI 的底物/产物转运机制进行深入解析,以期通过定向改造其通道关键氨基酸残基提高该酶分子的催化性能。
以催化三联体为起点,基于对接所获底物/产物结合位点对Pd-SI 酶分子进行了通道分析。 结果(图1-b)显示,活性位点与酶分子表面之间存在3 条主要通道(T1、T2 和T3),分别承担底物进入(T1)与产物排出(T2 和T3)的运输功能。 底物蔗糖与位于通道入口处的残基Gly263、Val264、Asp287 和Arg290 通过氢键相结合(结合能:-0.92 kcal/mol),参与了蔗糖在通道入口处的初步识别与定向结给合,并促进其向活性位点转运。 产物异麦芽酮糖则与位于通道末端的残基Leu158、Asp159 和Lys160 形成氢键(结合能:-0.78 kcal/mol),提示该区域为产物离开活性位点的主要出口,Lys160 等残基可能对产物释放速率具有调控作用,是潜在的产物释放瓶颈位点。 进一步对单糖组分的结合模式进行分析,以验证上述通道功能的划分。 葡萄糖与残基 Asp206、 Glu260、 Asp67、Thr207 和Arg421 形成氢键(结合能:-3.26 kcal/mol),其结合位点与催化三联体残基Asp206 和Glu260 高度重叠,表明葡萄糖基团在蔗糖分子中主要由催化中心负责识别与定位,是蔗糖异构化反应的锚定单元。果糖与残基Trp304、Leu306、Asn496 和Lys517 相互作用(结合能:-3.02 kcal/mol),其结合位点位于通道出口区域,与产物异麦芽酮糖的结合区域存在空间重叠,提示蔗糖中果糖基团的朝向与产物异麦芽酮糖的释放路径高度关联。 上述结果共同表明,底物蔗糖的进入与产物异麦芽酮糖的释放分别依赖不同的通道区域,而Lys160 所在的通道末端区域是产物释放的关键瓶颈;Arg290 等通道入口残基则对底物的初步捕获具有重要作用。 这一分析为后续靶向通道关键残基(Lys160 和Lys302/Arg290)的理性改造提供了直接的结构依据。
除通道工程外,酶蛋白的稳定性同样是保证酶高效催化的结构基础,两者共同决定了酶在复杂环境下的整体性能。 通过预测单点突变引起的折叠自由能变化(ΔΔG),可评估突变对酶蛋白稳定性的影响[14]。当ΔΔG >0 时,表明预测突变有利于蛋白质热力学稳定性的增强;ΔΔG 值越大,突变对蛋白质稳定化的贡献越显著[27];利用ΔΔG 筛选稳定化突变位点的策略已被有效应用于酶的热稳定性改造。 例如,以ΔΔG与B-factor 为双参数筛选β-甘露聚糖酶稳定性提高的突变位点,成功获得热稳定性显著提升的突变体[28]。 因此,为进一步从热稳定性角度评估K160 和K302 作为改造靶点的合理性,对Pd-SI 全序列进行单点突变自由能变化扫描预测。 扫描结果显示,全序列中共有23 个残基(E42、E81、E94、S149、K160、K213、K222、K226、N227、N237、E244、K302、S307、S353、K355、N380、N435、N448、N450、N528、N547、N564、S549)的突变预测ΔΔG >0,将其与通道分析所鉴定的关键位点进行交叉比对,K160 和K302 同时出现在2 项分析结果之中(图1-c)。 同时,K160 和K302 饱和突变的预测结果显示,绝大部分突变体的ΔΔG >0 且可靠性指数均达到RI≥8,处于较高置信度水平。 这一结果表明,针对K160 和K302 的定点突变改造在热力学层面具有合理性,对上述位点的氨基酸替换预期可增强Pd-SI 局部结构的稳定性,从而对酶分子整体热稳定性产生正向贡献。 综合通道分析与热稳定性预测2 条独立证据线,K160 和K302 同时满足“通道关键功能位点”与“热稳定性改造潜力位点”的双重标准,因此被最终确定为后续定点突变与理性设计的目标氨基酸残基。
2.2 蔗糖异构酶突变体筛选与设计
为确定K160 和K302 位点的最优突变氨基酸,分别对2 个位点进行计算机辅助饱和突变扫描,将各位点分别替换为其余19 种天然氨基酸,其自由能变化结果如图2-a 所示。 对筛选出的ΔΔG 提升较为明显的突变体(K160V、K160L、K160I、K160M、K160F、K160Y、K160P、K302V、K302L、K302I、K302F、K302Y、K302P、K302R)进一步进行与蔗糖的分子对接分析。 结果显示,K160M 和K302Y 对蔗糖的结合能最高,分别为-2.17 kcal/mol 和-0.50 kcal/mol,提示此突变后在增强稳定性的同时,较好地保留了对底物的结合能力。

图2 P.dispersa 蔗糖异构酶突变体稳定性预测及通道结构模拟
Fig.2 Stability prediction and tunnel structure simulation of P.dispersa sucrose isomerase
进一步预测分析K160M/K302Y 突变体(重新命名为:SI-MY)的分子对接结合能与通道几何参数,系统评估该候选突变体与底物/产物的相互作用模式及通道结构变化,结果如图2-b 和图2-c 所示。 葡萄糖与氨基酸残基 Asp67、 Glu260、 His333、 Asp334 和Arg421 形成氢键(结合能:-3.22 kcal/mol),其中参与该酶催化的氨基酸残基Glu260 仍直接参与葡萄糖基团的识别与定位,表明突变未改变葡萄糖作为蔗糖异构化反应锚定单元的结合方式。 K160M 和K302Y突变后其果糖结合位点(结合能:-3. 04 kcal/mol)无显著变化,提示突变并未改变果糖基团的朝向。 采用异麦芽酮糖与果糖同时进行分子对接发现,异麦芽酮糖与果糖对接至相同区域并汇聚于通道T3 出口处,而在野生型Pd-SI 分子中,两者分别结合于不同区域(图2-b),提示突变后酶分子通过协同重构产物出口通道的空间构型与释放,提升产物的排出效率与整体催化周转速率。 进一步对比分析突变前后的酶分子通道T1 和通道T3 的变化,结果汇总于表2。 突变后T1 通道的瓶颈半径没有发生显著改变,但通道的曲率下降了9.53%,长度缩短了9.75%,能量消耗下降了17.39%,并且通量提升了12.28%,预示蔗糖进入到催化域的阻力明显减小。 突变后通道T3 的曲率下降了2.21%,长度缩短了0.99%,虽瓶颈半径减小了13.66%,但是能量消耗降低了8.8%,且通量提升了37.5%。 这些结果均表明,K160M 和K302Y 突变对通道结构产生了积极的优化效应[17]。
表2 P.dispersa 蔗糖异构酶及其突变体的通道特征
Table 2 Tunnel characteristics of P.dispersa sucrose isomerase and its mutant
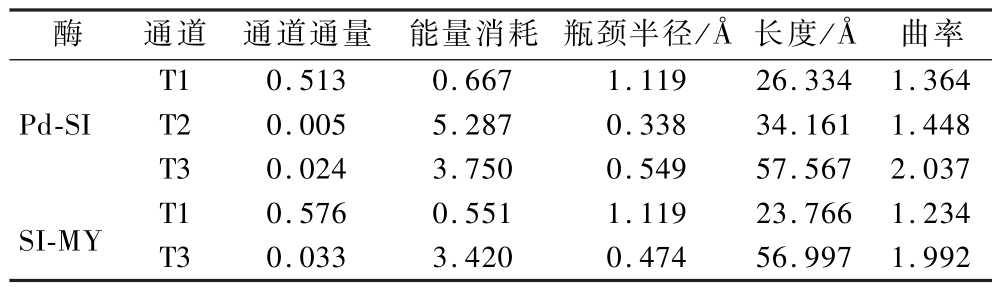
酶通道 通道通量 能量消耗 瓶颈半径/Å 长度/Å 曲率T10.5130.6671.11926.334 1.364 Pd-SIT20.0055.2870.33834.161 1.448 T30.0243.7500.54957.567 2.037 SI-MYT10.5760.5511.11923.766 1.234 T30.0333.4200.47456.997 1.992
2.3 突变体SI-MY 的创建及其催化特征解析
2.3.1 突变体SI-MY 的创建、制备与纯化
按照材料与方法部分的技术路线,通过定点突变技术将K160M 和K302Y 突变位点引入P. dispersa 蔗糖异构酶Pd-SI,借助表达载体pPIC9K 在P. pastoris GS115 中实现P. dispersa 蔗糖异构酶突变体SI-MY的异源表达与发酵液制备,所得发酵粗酶液的表达酶活为8.13 U/mL。 进一步对粗酶液进行纯化处理,纯化后的重组SI-MY 在SDS-PAGE 电泳中显示纯化样品在约62 kDa 处呈现单一清晰条带(图3),分子质量大小符合预期,纯化效果良好。 纯化后的突变体SI-MY 的比酶活为651.9 U/mg,较野生型Pd-SI 提高了22.1%,表明K160M 和K302Y 突变显著增强了单位酶分子的催化能力。
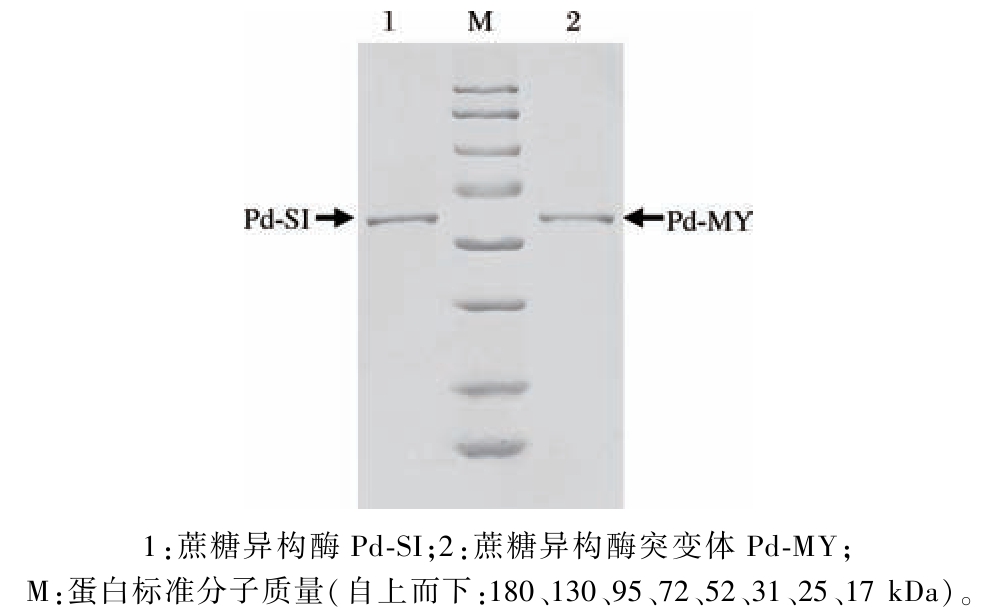
图3 重组蔗糖异构酶SI-MY 纯化后的SDS-PAGE 检验
Fig.3 SDS-PAGE analysis of purified recombinant SI-MY
2.3.2 蔗糖异构酶及其突变体的酶学性质
分析pH 对突变体SI-MY 催化性能的影响,结果显示,突变体SI-MY 的最适pH 值为5.5 ~6.0,较野生型在酸性方向上轻度拓展(图4-a),推测两位点协同突变引起了活性位点局部电荷环境的改变,从而影响了底物结合的最适质子化状态[29]。 在pH 5. 5 ~7.0 范围内孵育1 h 后,Pd-SI 及突变体SI-MY 均可保留70%以上的相对酶活力(图4-b),表明突变对该酶的pH 稳定性未造成显著影响。
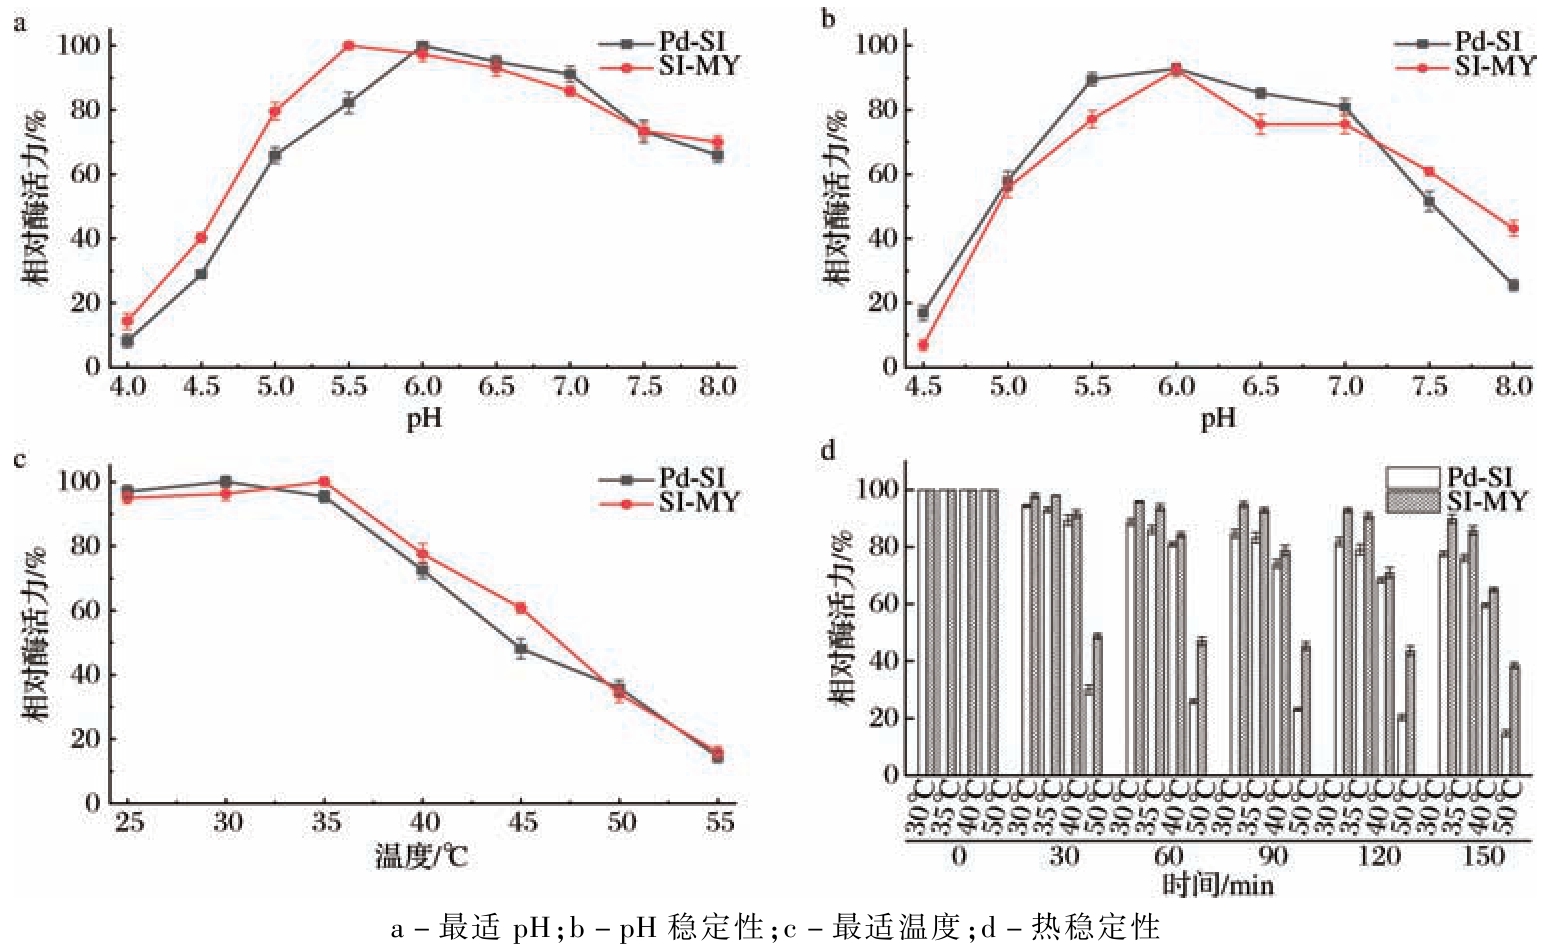
图4 突变体SI-MY 生化特征
Fig.4 Biochemical characterization of SI-MY
温度对突变体SI-MY 催化性能的影响分析表明,突变体SI-MY 的最适作用温度提升至35 ℃,较野生型Pd-SI 提高了5 ℃(图4-c),提示突变位点的引入增强了蛋白质的构象刚性。 进一步对比分析其热稳定性变化,结果如图4-d 和表3 所示。 随热处理温度升高与时间延长,突变体SI-MY 与野生型Pd-SI残余酶活力均呈下降趋势。 在30 ℃与35 ℃条件下,两者酶活力下降均相对平缓,热处理150 min 后,SI-MY残余酶活力分别为89. 85% 和85. 79%,较Pd-SI(77.63%和76. 23%)分别提高12. 22% 和9. 56%;且SI-MY 在30 ℃与35 ℃的半衰期(t1/2)分别为1031.88 min 和725. 61 min,较Pd-SI(417. 43 min、387.41 min)提高2.47 倍和1.87 倍,表明SI-MY 在温和温度条件下已具备明显的热稳定性优势。 在40 ℃条件下,两者酶活力衰减速率均有所加快,150 min 处理后Pd-SI 残余酶活力降至59.63%,SI-MY 为65.11%,较Pd-SI 仅提高了5.48%;此温度下SI-MY 半衰期下降至244. 48 min,但仍较Pd-SI 提升1. 17 倍。 在50 ℃高温条件下,Pd-SI 酶活力急剧衰减,仅30 min残余酶活力便骤降至30%,90 min 时进一步降至23.11%;SI-MY 在相同条件下表现出更强的耐热性,30 min 时残余酶活力达48. 74%,90 min 时仍保留45.32%,较Pd-SI 高出22. 21%。 上述结果表明,突变体SI-MY 在各温度条件下的热稳定性均优于野生型Pd-SI,显示理性定点突变同步显著提升了该酶的最适作用温度和热稳定性,也预示该突变体对异麦芽酮糖酶促合成工艺优化具有重要价值。
表3 不同温度下突变体SI-MY 的半衰期
Table 3 The half-life of SI-MY at different temperatures
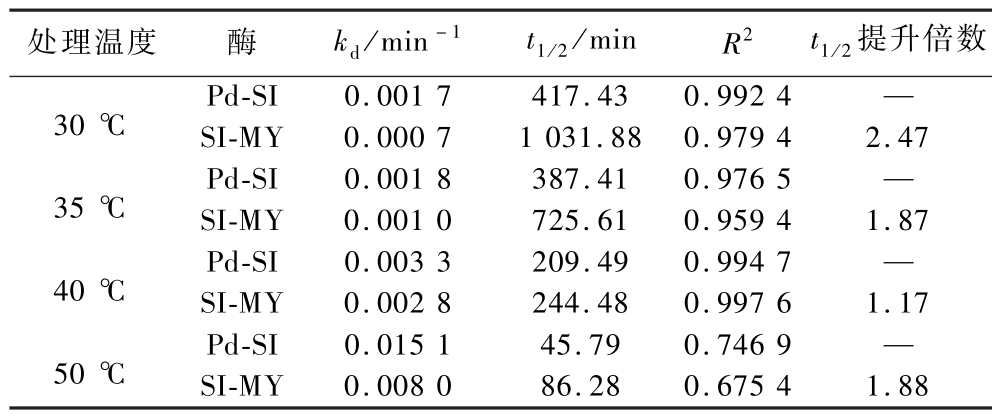
处理温度酶kd/min -1t1/2 /minR2t1/2 提升倍数30 ℃Pd-SI0.001 7417.430.992 4—SI-MY0.000 71 031.88 0.979 42.47 35 ℃Pd-SI0.001 8387.410.976 5—SI-MY0.001 0725.610.959 41.87 40 ℃Pd-SI0.003 3209.490.994 7—SI-MY0.002 8244.480.997 61.17 50 ℃Pd-SI0.015 145.790.746 9—SI-MY0.008 086.280.675 41.88
注:—表示无数据。
2.3.3 突变体SI-MY 的酶促动力学特征
酶促动力学参数Km、kcat及kcat/Km 分别反映酶与底物的亲和力、单分子催化周转速率及综合催化效率,是评价酶催化性质的重要指标[30]。 对纯化后的蔗糖异构酶突变体SI-MY 进行酶促动力学分析,结果汇总于表4。 突变体SI-MY 的Km 值较野生型降低约61.24%,提示突变优化了活性中心对底物的识别与结合模式,显著提升蔗糖异构酶对底物的亲和力,从而加快酶促反应。 突变体SI-MY 的kcat 相较于Pd-SI提高了52.31%,表明SI-MY 显著加快了单个酶分子的催化周转速率。 突变体SI-MY 催化效率(kcat/Km)较野生型提升了2.92 倍,这一显著提升是底物亲和力增强(Km 降低61.24%)与催化转化数提高(kcat 提升52. 31%)协同作用的结果,表明突变后通过重构底物入口通道与产物出口通道的空间构型,同时优化了底物结合与产物释放2 个关键步骤,从而实现了催化效率的大幅提升[1,13,31-32]。
表4 突变体SI-MY 酶促动力学参数
Table 4 Kinetic parameters of SI-MY
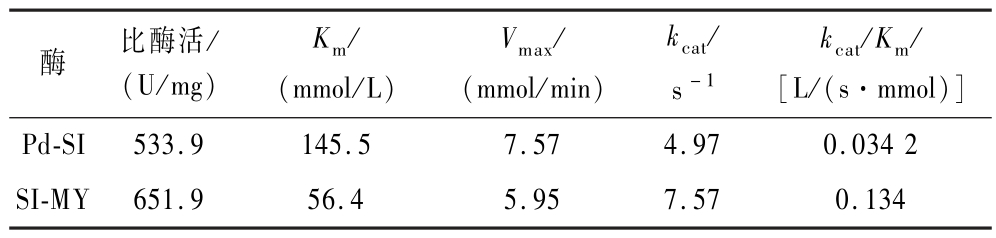
酶比酶活/(U/mg)Km/(mmol/L)Vmax/(mmol/min)kcat/s -1 kcat/Km/[L/(s·mmol)]Pd-SI533.9145.57.574.970.034 2 SI-MY651.956.45.957.570.134
2.4 蔗糖异构酶SI-MY 催化合成异麦芽酮糖的动力学表征
为评估突变体SI-MY 在工业生产条件下的催化性能,分别分析了野生型Pd-SI 与突变体SI-MY 在不同温度下催化蔗糖异构化合成异麦芽酮糖的转化率(图5)。 结果显示,突变体SI-MY 在所有测试温度下的异麦芽酮糖生成速率均显著优于野生型Pd-SI。 在30 ℃条件下(图5-a),反应4 h 时,SI-MY 的异麦芽酮糖转化率已达52. 71%,而野生型Pd-SI 仅为31.10%;反应32 h 后,两者转化率趋于接近,分别为94.11%和94.57%。 在35 ℃条件下(图5-b),SI-MY的初始反应速率优势更为突出,反应4 h 时转化率达63.82%,较野生型Pd-SI(44.53%)提高了19.29%;反应32 h 时,SI-MY 最终转化率为95.84%,较野生型Pd-SI(93.37%)提高了2.47%。 在40 ℃条件下(图5-c),SI-MY 在反应16 h 时达到最高转化率95.76%,野生型Pd-SI 仅为93.85%;在50 ℃条件下(图5-d),反应16 h 时,SI-MY 转化率高达95.63%,而野生型Pd-SI 仅为84.41%,相差11.22%。 可见突变体在高温下的稳定性明显优于野生型。 此外,本研究获得的突变体SI-MY 在催化蔗糖异构化合成异麦芽酮糖时的转化率与与同类研究水平相似[1,13]。
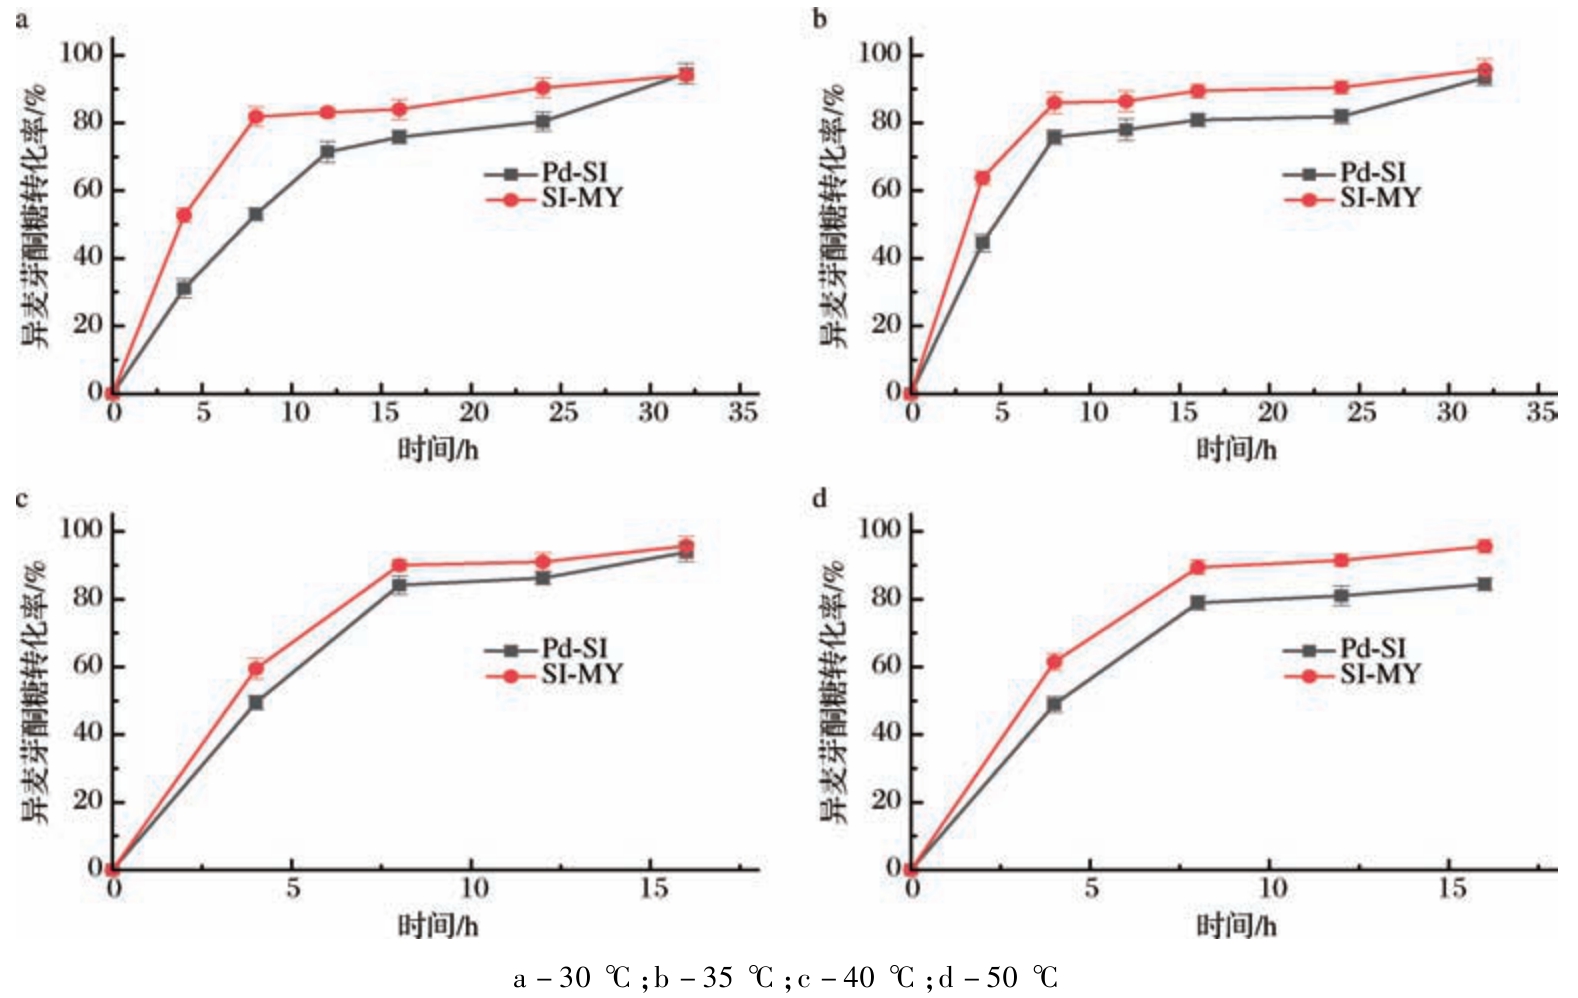
图5 突变体SI-MY 催化生成异麦芽酮糖的反应进程
Fig.5 Synthesis process of isomaltulose catalyzed by SI-MY
上述结果表明,双位点突变K160M/K302Y 显著提升了蔗糖异构酶的催化效率与热稳定性,尤其在40 ℃和50 ℃条件下其优势更为突出。 这一特性与工业生产对酶制剂耐热性的需求高度契合,提示SI-MY在异麦芽酮糖的工业化酶法制备中具有良好的应用潜力。
3 结论
本研究基于酶分子结构解析,系统阐明了P. dispersa 蔗糖异构酶底物/产物通道的分子结构特征,成功识别了该酶分子产物通道释放瓶颈与底物通道入口的关键氨基酸残基。 通过对上述通道关键残基的理性设计与定点突变,成功构建了双突变体SI-MY(K160M/K302Y)。 酶学性质分析和应用实验结果表明,针对底物/产物运输通道关键残基的理性改造,可有效实现蔗糖异构酶热稳定性与催化性能的协同提升,所获突变体在异麦芽酮糖的工业生产条件下显示出优异催化性能,具备工业化应用潜力。 本研究为通过底物/产物通道理性改造提升工业酶的催化性能提供了方法和理论参考。
[1] Meng H, Li C, Shen Q, et al. Engineering sucrose isomerase by truncation and directed evolution for thermostability and efficient isomaltulose production[J]. Journal of Agricultural and Food Chemistry, 2025, 73(45):28976 -28985.
[2] Shyam S, Ramadas A, Chang S K. Isomaltulose:recent evidence for health benefits[J]. Journal of Functional Foods,2018,48:173 -178.
[3] Chen N, Chang B G, Shi N, et al. Robust and recyclable crosslinked enzyme aggregates of sucrose isomerase for isomaltulose production[J]. Food Chemistry, 2023, 399:134000.
[4] Li Y, Xue M M, Zhang K. Isomaltulose[M]. Biomanufacture of Functional Carbohydrates. Boca Raton:CRC Press,2024:180 -205.
[5] Cheetham P S. The extraction and mechanism of a novel isomaltulose-synthesizing enzyme from Erwinia rhapontici[J]. The Biochemical Journal, 1984, 220(1):213 -220.
[6] Liu L, Yu S H, Zhao W. A novel sucrose isomerase producing isomaltulose from Raoultella terrigena[J]. Applied Sciences, 2021,11(12):5521.
[7] Liu L N, Bilal M, Luo H Z, et al. Studies on biological production of isomaltulose using sucrose isomerase:Current status and future perspectives[J]. Catalysis Letters, 2021, 151(7):1868 -1881.
[8] Sardiña-Peña A J, Mesa-Ramos L, Iglesias-Figueroa B F, et al.Analyzing current trends and possible strategies to improve sucrose isomerases’ thermostability[J]. International Journal of Molecular Sciences, 2023, 24(19):14513.
[9] Jin L Q, Wan Q, Ouyang S P, et al. Isomerase and epimerase:Overview and practical application in production of functional sugars[J]. Critical Reviews in Food Science and Nutrition, 2024, 64(33):13133 -13148.
[10] Zhao J H, Niu D D, Liu J Q, et al. Enhancing β-galactosidase performance for galactooligosaccharides preparation via strategic glucose re-tunneling[J]. International Journal of Molecular Sciences, 2024, 25(22):12316.
[11] 靳卓琳, 牛丹丹, 赵继华, 等. 底物通道定向疏通显著提升乳糖酶催化性能[J]. 食品与发酵工业, 2026, 52(7):19 -25.Jin Z L, Niu D D, Zhao J H, et al. Targeted modulation of substrate tunnel architecture significantly augments lactase catalytic performance[J]. Food and Fermentation Industries, 2026, 52(7):19 -25.
[12] Sardiña-Peña A J, Ballinas-Casarrubias L, Siqueiros-Cendón T S,et al. Thermostability improvement of sucrose isomerase PalI NX-5:A comprehensive strategy[J]. Biotechnology Letters,2023,45(7):885 -904.
[13] Lin H L, Wu J, Chen S, et al. Enhancing the thermostability of Pantoea dispersa sucrose isomerase using semi-rational design strategy[J]. Systems Microbiology and Biomanufacturing, 2025, 5(3):1142 -1153.
[14] Capriotti E, Fariselli P, Casadio R. I-Mutant2.0:Predicting stability changes upon mutation from the protein sequence or structure[J]. Nucleic Acids Research, 2005, 33:W306 -W310.
[15] Rakotoharisoa R V, Seifinoferest B, Zarifi N, et al. Design of efficient artificial enzymes using crystallographically enhanced conformational sampling[J]. Journal of the American Chemical Society,2024, 146(14):10001 -10013.
[16] Morris G M, Huey R, Lindstrom W, et al. AutoDock4 and AutoDockTools4:Automated docking with selective receptor flexibility[J]. Journal of Computational Chemistry, 2009, 30(16):2785 -2791.
[17] Stourac J, Vavra O, Kokkonen P, et al. Caver Web 1.0:Identification of tunnels and channels in proteins and analysis of ligand transport[J]. Nucleic Acids Research, 2019, 47(W1):W414 -W422.
[18] SCHRÖDINGER, LLC. The PyMOL Molecular Graphics System,Version 1.8[Z]. 2015.
[19] 诸葛健,王正祥. 工业微生物实验技术手册[M]. 北京:中国轻工业出版社, 1994.Zhuge J, Wang Z X. Handbook of industrial microbiological experimental techniques[M]. Beijing:China Light Industry Press,1994.
[20] 李梦迪, 张志萌, 董自星, 等. 黑曲霉单宁酶TahA 的克隆表达和酶学特性解析[J]. 食品与发酵工业,2018,44(11):15 -21.Li M D, Zhang Z M, Dong Z X, et al. Cloning, expression and biochemical characterization of tannase TahA from Aspergillus niger[J]. Food and Fermentation Industries, 2018, 44(11):15 -21.
[21] Bradford M M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding[J]. Analytical Biochemistry, 1976, 72(1 - 2):248 -254.
[22] van Wyk J C, Sewell B T, Danson M J, et al. Engineering enhanced thermostability into the Geobacillus pallidus nitrile hydratase[J]. Current Research in Structural Biology, 2022, 4:256 -270.
[23] Li Z Y, Meng S Q, Nie K L, et al. Flexibility regulation of loops surrounding the tunnel entrance in cytochrome P450 enhanced substrate access substantially[J]. ACS Catalysis, 2022, 12(20):12800 -12808.
[24] Zhou Y C, Ma C J, Chen H, et al. Mechanistic insights into enzyme gate engineering of ω-transaminase for regulating organic solvent resistance[J]. Journal of Agricultural and Food Chemistry,2025, 73(31):19607 -19617.
[25] Feng Y, Chen X H, Li Z Y, et al. Engineering a broad-spectrum glucose oxidase via substrate channel and linker design for enhanced lignocellulose bioconversion[J]. Synthetic and Systems Biotechnology, 2026, 12:218 -228.
[26] Liang J, Du J, Zhang X, et al. Analysis of glucose inhibition characteristics during high-solids enzymatic hydrolysis of pretreated lignocellulose[J]. Industrial Crops and Products, 2025, 234:121560.
[27] Benevenuta S, Birolo G, Sanavia T, et al. Challenges in predicting stabilizing variations:an exploration[J]. Frontiers in Molecular Biosciences, 2022, 9:1075570.
[28] Tan S D, Tao X M, Zheng P, et al. Thermostability modification of β-mannanase from Aspergillus niger via flexibility modification engineering[J]. Frontiers in Microbiology, 2023, 14:1119232.
[29] Hu Y, Lv Y, Tang H, et al. An overview of industrial enzyme engineering to achieve a pH adaptability-activity trade-off:current status and future perspectives[J]. Journal of Agricultural and Food Chemistry, 2025, 73(33):20547 -20562.
[30] Ma Y, Eser B E. Bridging disciplines in enzyme kinetics:Understanding steady-state, transient-state and performance parameters[J]. Catalysts, 2025, 15(12):1139.
[31] Wu L G, Birch R G. Characterization of the highly efficient sucrose isomerase from Pantoea dispersa UQ68J and cloning of the sucrose isomerase gene[J]. Applied and Environmental Microbiology, 2005, 71(3):1581 -1590.
[32] Hu M K, Liu F, Wang Z, et al. Sustainable isomaltulose production in Corynebacterium glutamicum by engineering the thermostability of sucrose isomerase coupled with one-step simplified cell immobilization[J]. Frontiers in Microbiology, 2022, 13:979079.