母乳作为婴幼儿最理想的天然食物,被认为是生命早期营养的“金标准”,包含乳铁蛋白、免疫球蛋白、母乳低聚糖和胞外囊泡等[1],为婴幼儿的生长发育提供全面、均衡的营养物质。 母乳具有塑造婴幼儿肠道微生物组成、提高免疫力、促进大脑发育等多重功效[2]。 据统计我国6 月龄纯母乳喂养率仅达29.2%,远低于世界平均水平。 当母亲无法喂养或者乳汁不足够时,婴幼儿配方奶粉成为替代母乳的首选食物。婴幼儿配方奶粉先后历经基础营养素均衡的第1 阶段、营养素强化的第2 阶段,已进入特殊功能配料强化的第3 阶段。 特殊功能配料强化第3 阶段中的母乳低聚糖、乳铁蛋白等营养成分的研究与开发均已取得进展[3-4]。 近些年来,关于乳源胞外囊泡这一特殊功能配料的研究逐渐受到国内外关注。
乳源胞外囊泡是一种广泛存在于人和动物乳汁中的纳米级囊泡,富含蛋白质、核酸和脂质等活性物质,已被证实具有调节肠道健康、改善免疫与代谢过程和促进神经发育等作用[5-6]。 目前的研究主要集中于母乳胞外囊泡(human milk-derived extracellular vesicles,H-mEVs)和牛乳胞外囊泡(bovine milk-derived extracellular vesicles,B-mEVs)的蛋白质、核酸的组成和功能解析,但是关于H-mEVs 和B-mEVs 的脂质差异分析鲜见报道。 脂质在提供能量和促进婴幼儿生长发育方面发挥至关重要的作用[7]。 比如鞘磷脂具有促进婴幼儿语言和认知神经发育作用[8];胆碱和磷脂酰胆碱缺乏会增加婴幼儿坏死性小肠结肠炎的风险[9];磷脂酰乙醇胺具有通过调节肠道屏障功能从而改善生长迟缓的潜力[10]。 牛乳基婴儿配方乳粉越来越广泛应用于婴幼儿配方奶粉中,全面分析H-mEVs 与B-mEVs 脂质差异有利于牛乳基婴幼儿配方奶粉的“母乳化”进程。
基于目前研究现状,本研究通过超速离心法获得H-mEVs 和B-mEVs,再基于非靶向脂质组学技术探究H-mEVs 与B-mEVs 的脂质组成,旨在明确H-mEVs和B-mEVs 的脂质差异,为开发新一代母乳化婴幼儿配方奶粉提供重要指导和理论依据。
1 材料与方法
1.1 材料与试剂
母乳样本收集于山东省青岛市志愿者(哺乳期3 ~6 月,25 ~30 岁女性),采集样本时间为上午9∶00 ~11∶00。 志愿者身体健康。 生牛乳收购于山东省青岛市鲜奶站。 收集当天用冰盒将母乳和生牛乳样本运送回实验室,24 h 内完成样本中乳清的提取备用。
乙腈、甲醇、Formic acid、氨水、甲基叔丁基醚,默克密理博公司;甲酸铵,上海阿拉丁生化科技股份有限公司;PBS,生工生物工程(上海)股份有限公司;BCA 蛋白浓度测定试剂盒,碧云天生物技术有限公司。
0.45 μm 过滤膜,BBI 生命科学有限公司;0.22 μm过滤膜,津腾实验设备有限公司。
1.2 仪器与设备
CP100MX 超速离心机、HT-7700 透射电镜,日立高新技术公司;Concentrator plus 真空离心浓缩仪,德国艾本德股份公司;PMX120 纳米颗粒跟踪分析仪,德国粒子矩阵有限公司;Varioskan LUX 多功能酶标仪、Q Exactive Plus 质谱仪,赛默飞世尔科技(中国)有限公司;ZS90 纳米粒度分析仪,马尔文仪器公司;Nexera X2 LC-30AD 超高压液相色谱仪,株式会社岛津制作所;TG20KR-D 高速冷冻离心机,长沙东旺实验仪器有限公司。
1.3 实验方法
1.3.1 H-mEVs 和B-mEVs 的提取
参考Tong 等[11]的方法提取乳清,将乳清转移至新的离心管内,于4 ℃,2 000 ×g 离心30 min。 小心吸取上清液移至新的离心管中,在4 ℃条件下10 000 ×g离心45 min,去除较大的囊泡。 取上清液,经0.45 μm滤膜过滤,收集过滤液。 将过滤液移至新的离心管中,于4 ℃,100 000 × g 超速离心70 min,去除上清液。 用10 mL 预冷的PBS 重悬后,再次于4 ℃,100 000 ×g 超速离心70 min,去除上清液。 用200 μL预冷的PBS 重悬离心管底部样品,获得胞外囊泡溶液,将其置于-80 ℃条件下保存。
1.3.2 H-mEVs 和B-mEVs 的鉴定
1.3.2.1 H-mEVs 和B-mEVs 的形态测定
分别吸取10 μL H-mEVs 和B-mEVs 于铜网上,沉淀1 min,滤纸吸去浮液。 取10 μL 醋酸双氧铀滴加于铜网上,沉淀1 min,滤纸吸去浮液。 常温干燥数分钟后,在80 kV 条件下进行电镜检测成像。
1.3.2.2 H-mEVs 和B-mEVs 的粒径测定
取胞外囊泡,于25 ℃水浴解冻,冰上放置。 取适量PBS 对H-mEVs 和B-mEVs 进行稀释,将稀释后的样品采用动态光散射(dynamic light scattering,DLS)技术进行粒径检测,采用纳米颗粒示踪(nano-particle tracking analysis,NTA)技术进行粒径和颗粒数检测。
1.3.2.3 H-mEVs 和B-mEVs 的蛋白含量测定
取胞外囊泡于37 ℃水浴锅中速融,并迅速加入5 ×放射免疫沉淀分析(radio immunoprecipitation assay,RIPA)裂解液。 混匀后置于冰上裂解30 min,期间反复涡旋。 配制BCA 法测蛋白含量所需的标准蛋白样品,取20 μL 胞外囊泡溶液,加入200 μL BCA 混合液,混匀。 37 ℃孵育30 min,用酶标仪检测其在562 nm 处吸光值。 根据标准曲线计算出H-mEVs 和B-mEVs 的蛋白含量。
1.3.3 H-mEVs 和B-mEVs 脂质的提取
参考Wang 等[12]的方法并稍作修改,取H-mEVs和B-mEVs 样品各6 份,加入200 μL 预冷的甲醇溶液[V(甲醇)∶V(水) =3∶1],冰水浴超声15 min。 加入1 mL 预冷的甲基叔丁基醚,先于4 ℃条件下涡旋混匀,再于冰水浴中超声。 然后加入100 μL PBS,涡旋振荡1 min,室温静置10 min。 在4 ℃、14 000 × g条件下离心15 min,沉淀风干后,加入200 μL 总蛋白裂解缓冲液溶液。 采用BCA 法测定样品中蛋白质浓度,依据样品中的蛋白量推算不同样品中胞外囊泡的量,每例样品取含有等量胞外囊泡的上清液。 将上清液在高速真空浓缩离心机中挥干,再加入70 μL 预冷的异丙醇/甲醇溶液[V(异丙醇)∶V(甲醇) =1∶1]复溶。 将复溶后的溶液于4 ℃条件下20 000 × g 离心20 min,取适量的上清液进样分析。
1.3.4 H-mEVs 和B-mEVs 的超高效液相色谱-串联质谱(ultra performance liquid chromatography-tandem mass spectrometry,UHPLC-MS/MS)分析
UHPLC 条件:本研究利用超高效液相色谱系统对样品进行色谱分离,使用Hypersil GOLDTM C18(2.1 mm ×100 mm,3 μm)色谱柱,柱温40 ℃。 采用4 ℃自动进样器,以保持检测稳定性。 进样量8 μL,流速0. 3 mL/min。 流动相A 由乙腈、水溶液和0.77 g 甲酸铵组成[V(乙腈)∶V(水) =4∶6]。 流动相B由乙腈和异丙醇组成[V(乙腈)∶V(异丙醇) =1∶9]。梯度洗脱程序如下:0 ~4 min,B 相比例从32%线性增至55%;4 ~10 min,B 相比例从55% 线性增至70%;10 ~18 min,B 相比例从70% 线性增至90%;18 ~20 min,B 相比例从90%线性增至97%;20 ~25 min,B 相比例保持在97%;25 ~25. 1 min,B 相比例从97%线性减至32%;25.1 ~30 min,B 相比例保持在32%。 为避免仪器检测信号波动而造成的影响,采用随机顺序,进行样本的连续分析。 每隔5 ~10 个实验样本设置1 个质量控制样品,用于监测和评价系统的稳定性及实验数据的可靠性。
MS 条件:MS 分析采用电喷雾电离的正离子和负离子模式进行检测。 主要条件为加热器温度300 ℃,鞘气流量为45 arb,辅助气体流量为15 arb,扫气流量为1 arb,毛细管温度为350 ℃,S-Lens 射频水平为50%,扫描范围设定为m/z 200 ~1 500。
1.4 数据统计分析
采用软件MSDAIL(Version 4. 0. 9)进行脂质鉴定和定量等处理。 数据经UV-scaling 处理后,进行多维统计分析,包括无监督主成分分析,有监督偏最小二乘法判别分析和正交偏最小二乘法判别分析。 单维统计分析包括t 检验和变异倍数分析等。 采用IBM SPSS Statistics 27 软件进行方差分析,Origin 2021软件制图。
2 结果与分析
2.1 H-mEVs 和B-mEVs 鉴定结果
2.1.1 H-mEVs 和B-mEVs 透射电镜观察
超速离心提取法是目前提取胞外囊泡最为常见的一种方法,具有引入污染少、操作相对容易、减少蛋白质聚集体等优势。 根据国际细胞外囊泡协会有关规定,形态和粒径分布情况是鉴定胞外囊泡的主要指标。 采用透射电镜技术检测H-mEVs 和B-mEVs 的形态。 由图1 所示,H-mEVs 和B-mEVs 在电镜下均呈现脂质双层膜包裹、“杯托状”结构,与Ran 等[13]先前报道的形貌特征类似,同时在透射电镜下观察到H-mEVs 的尺寸大于B-mEVs。
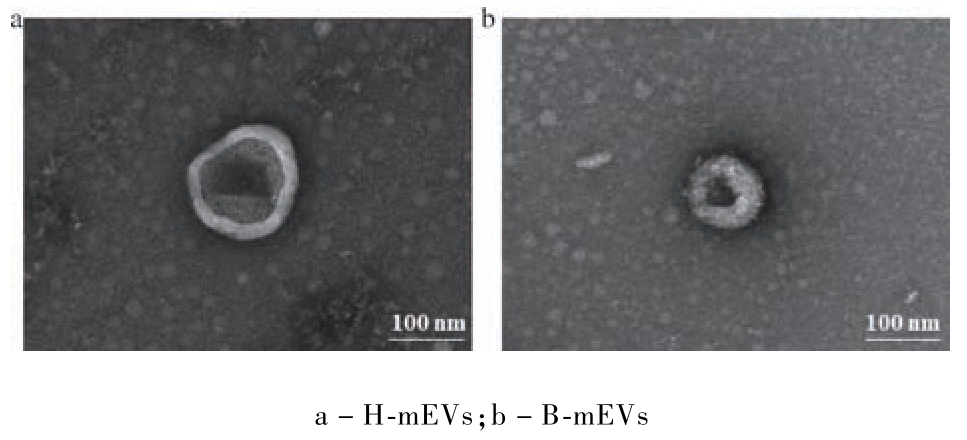
图1 H-mEVs 和B-mEVs 透射电镜图
Fig.1 Transmission electron microscopy images of H-mEVs and B-mEVs
2.1.2 H-mEVs 和B-mEVs 粒径分析
采用DLS 技术测定了H-mEVs 和B-mEVs粒径分布情况。 结果如图2-a、图2-b 所示,胞外囊泡颗粒分布均匀,均未出现明显杂峰,其中B-mEVs 平均粒径为(110.33 ±0.52) nm,H-mEVs 平均粒径为(157.63 ±1.60) nm,H-mEVs 平均粒径显著高于B-mEVs 平均粒径(P <0.05)。 考虑到检测方法的差异,进一步采用NTA 技术测定B-mEVs 和H-mEVs 的粒径分布和颗粒数。 结果如图2-c、图2-d 所示,B-mEVs 的平均粒径为(146.17 ±1.17) nm,颗粒数为2.8 ×10¹² 颗粒数/mL,H-mEVs 的平均粒径为(207.00 ±6.10) nm,颗粒数为7.8 ×10¹¹颗粒数/mL。 NTA 粒径检测结果与DLS 一致,表明H-mEVs 粒径显著大于B-mEVs 粒径(P <0.05),同时该结果与透射电镜观察结果相似。另外,Tong 等[14]发现H-mEVs 与B-mEVs 在粒径分布上存在差异。 H-mEVs 和B-mEVs 粒径差异可能与胞外囊泡的形成与分泌机制、细胞来源、成分种类与含量等差异相关。
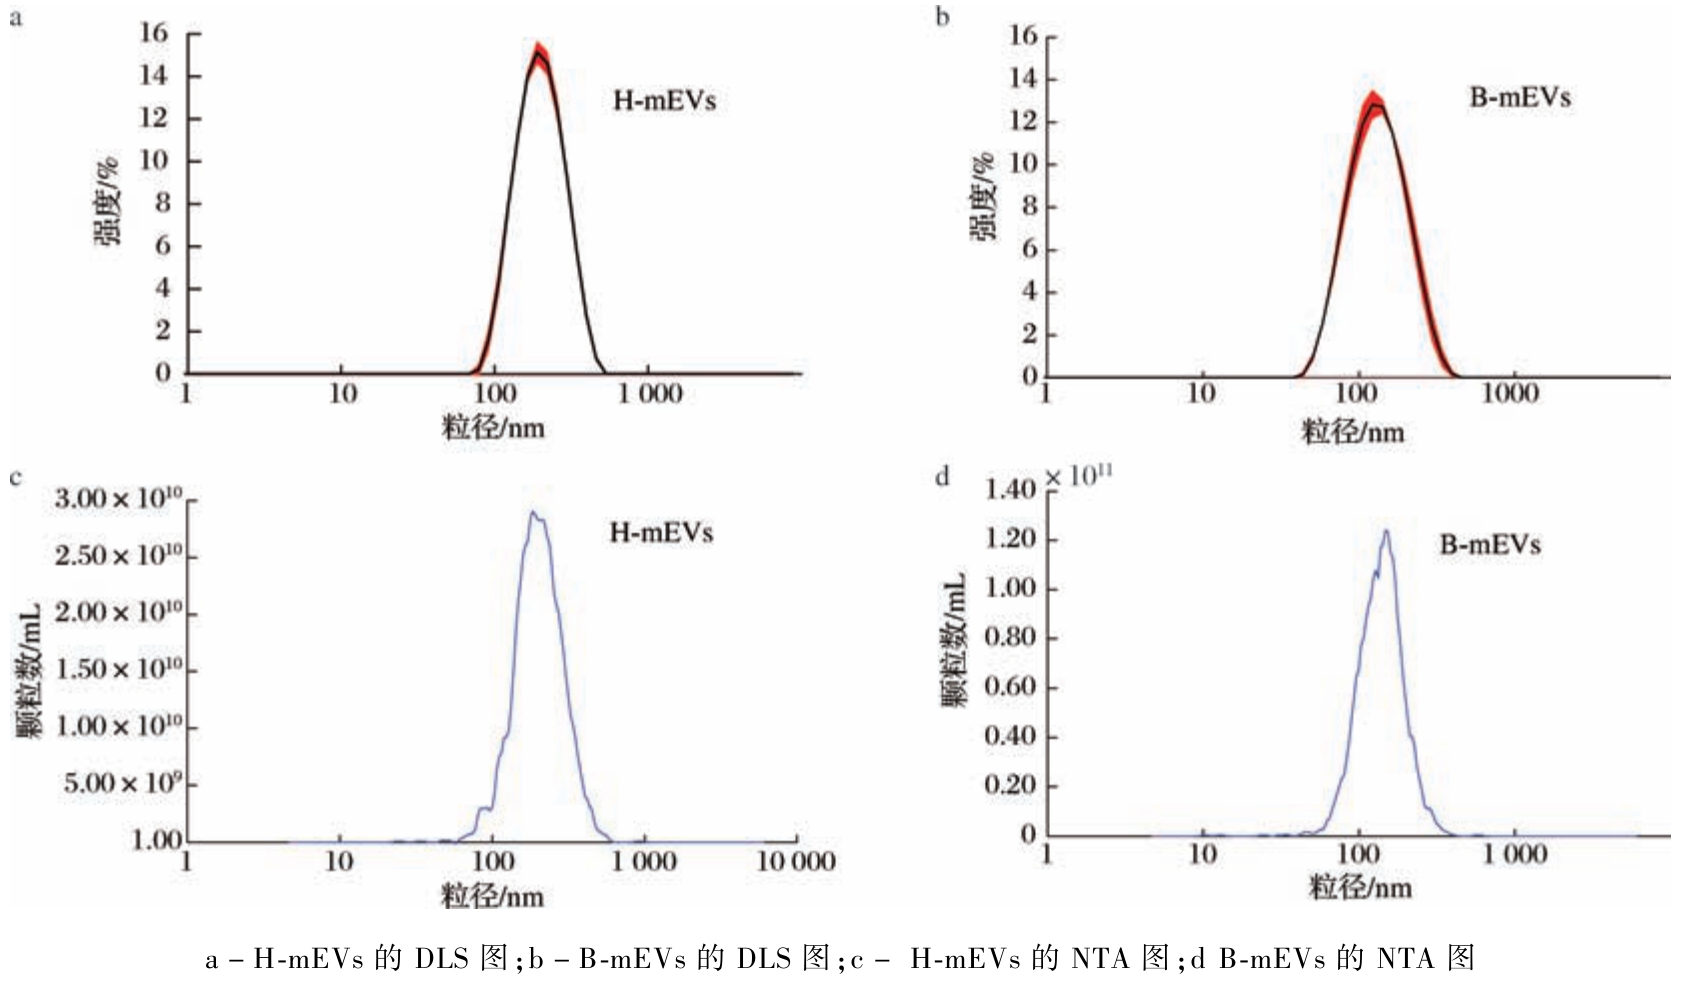
图2 H-mEVs 和B-mEVs 粒径比较图
Fig.2 Diameter distribution of H-mEVs and B-mEVs
2.1.3 H-mEVs 和B-mEVs 蛋白含量分析
目前,胞外囊泡传统定量方法包括颗粒数定量和蛋白定量。 本研究联合使用颗粒数定量和蛋白定量2 种方式。 在2.1.2 节利用NTA 对胞外囊泡颗粒数进行了测定,结果表明B-mEVs 颗粒数显著高于H-mEVs颗粒数(P <0.05)。 进一步采用蛋白定量法进行胞外囊泡定量验证,发现B-mEVs 蛋白含量也显著高于H-mEVs 蛋白含量(P <0.05)(图3)。 其中,B-mEVs 蛋白含量为(1.83 ±0.05) mg/mL,H-mEVs蛋白含量为(1.01 ±0.04) mg/mL,两者蛋白含量关系与NTA 检测得到的颗粒数关系相互印证。
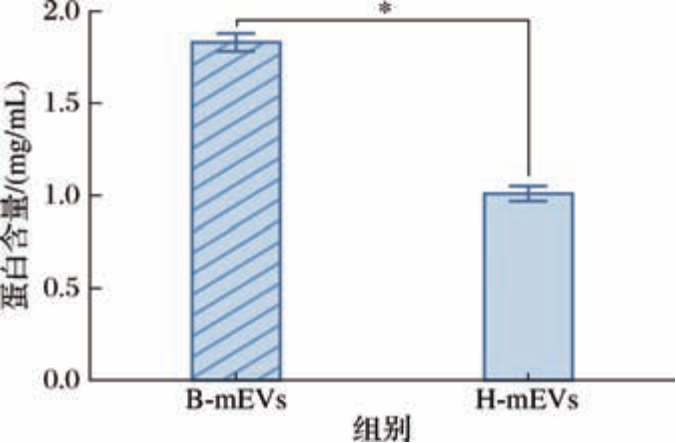
图3 H-mEVs 和B-mEVs 蛋白含量比较
Fig.3 Protein concentration of H-mEVs and B-mEVs
注:P <0.05 具有统计意义记为“*”。
2.2 H-mEVs 和B-mEVs 脂质组学分析
2.2.1 H-mEVs 和B-mEVs 脂质组成
脂质作为胞外囊泡的重要组成成分,不仅参与胞外囊泡的形成,而且赋予胞外囊泡丰富的营养价值。本研究采用脂质组学技术对H-mEVs 和B-mEVs 的脂质进行比较分析(图4)。 在H-mEVs 和B-mEVs 中共鉴定出30 种脂质亚类和549 种脂质分子,包括69种甘油三酯(triglyceride,TG)12. 57%、62 种脂肪酸(fatty acids,FA)11. 29%、56 种甘油二酯(diglyceride,DG)10.20%、50 种磷脂酰胆碱(phosphatidylcholine,PC)9. 11%、47 种鞘磷脂(sphingomyelin,SM)8.56%、46 种磷脂酰乙醇胺(phosphatidylethanolamine,PE)8. 38%、31 种磷脂酰丝氨酸(phosphatidylserine,PS)5. 65%、27 种磷脂酰肌醇(phosphatidylinositol,PI)4.92%、27 种氧化脂肪酸(oxidized fatty acids,Ox-FA)4. 92%、24 种神经酰胺(ceramide,Cer)4. 37%、22 种醚键型磷脂酰乙醇胺(ether phosphatidylethanolamine,EtherPE)4.01%、18 种N-酰基乙醇胺(N-acylethanolamines,NAE)3. 28%、14 种二己糖基神经酰胺(dihexosylceramide,Hex2Cer)2.55%、12 种己糖神经酰胺(hexosylceramide,HexCer)2.19% 和其他脂质分子(图4-a)。 同时,所有检测到的脂质涵盖六大类,即脂肪酸类(fatty acid,FA)19.67%、甘油脂类(glycerolipid,GL)24. 04%、甘油磷脂类(glycerophospholipid,GP)37.16%、鞘脂类(sphingolipid,SP)18. 21% 和固醇脂类(steroid lipid,ST)0.18%(图4-b)。
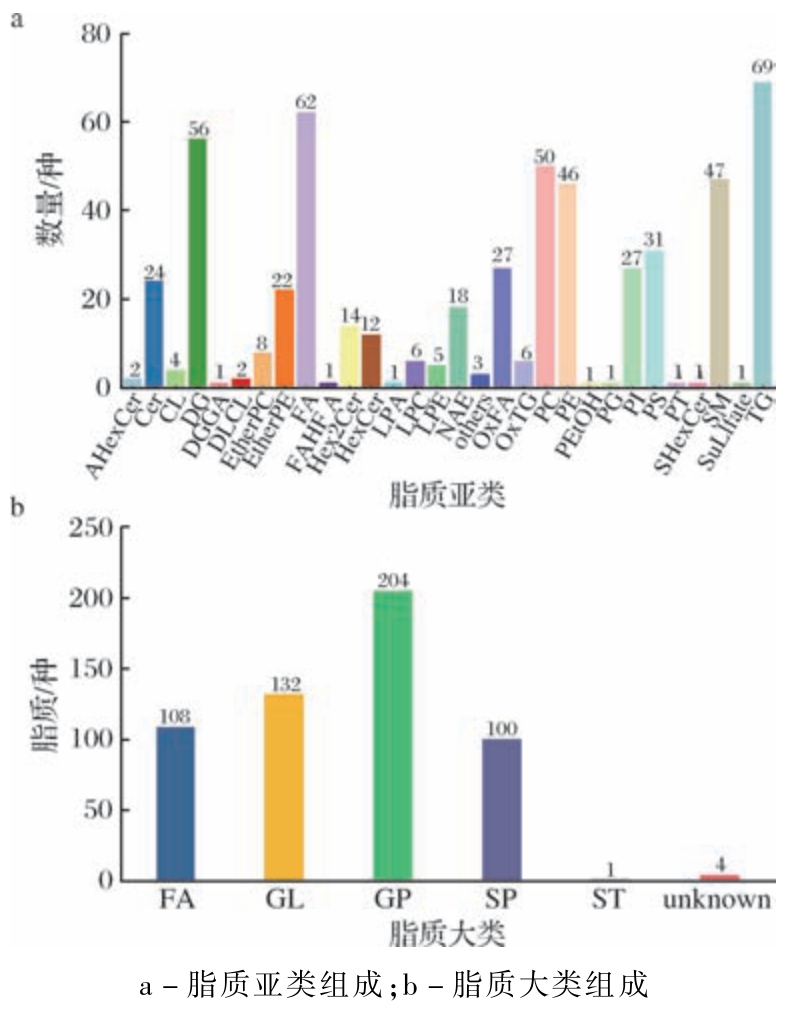
图4 脂质组成
Fig.4 Composition of lipid
2.2.2 H-mEVs 和B-mEVs 脂质亚类组成分析
在H-mEVs 和B-mEVs 样品中均发现30 种脂质亚类,结果如图5-a、图5-b 所示(按B-mEVs 脂质占比从高到低排列)。 H-mEVs 中脂质含量占比前5 的脂质亚类分别是DG(39.01%)、NAE(23.02%)、FA(16. 46%)、 OxFA (4. 96%) 和 PC (1. 50%), 在B-mEVs中脂质含量占比前5 的脂质亚类分别是TG(42. 38%)、 PC (15. 34%)、 DG (12. 47%)、 SM(7.26%) 和PE(5. 72%)。 结果表明,H-mEVs 和B-mEVs在脂质亚类的构成上存在一定差异。 进一步分析发现H-mEVs 和B-mEVs 在脂质亚类相对含量上存在显著差异。 在检测到的30 种脂质亚类中,H-mEVs有16 种脂质亚类的相对含量显著高于B-mEVs(P <0.05),其中相对含量差异性显著性前5的脂质亚类分别是FA、DG、EtherPC、心磷脂(cardiolipin,CL)和PG。 在组成方面,B-mEVs 中占比最高的脂质亚类为TG,而H-mEVs 中占比最高的脂质亚类为DG;在含量方面,H-mEVs 中DG 的相对含量显著高于B-mEVs 中DG 的相对含量(P <0.05)。 虽然DG 与TG 的分子结构相似,但是DG 与TG 的代谢途径不同。 TG 在机体运输过程中,少部分被机体细胞吸收使用,大部分贮存于脂肪细胞中,而DG 主要经过血液循环进入肝脏从而氧化供能[15]。 目前,DG 已被证明具有易消化[16]、降血脂[17]、调节脂质代谢和丰富肠道菌群多样性[18]等作用。 因此,婴幼儿食用添加DG 的奶粉在一定程度上可以调节机体脂质代谢。 PG 作为肺表面的活性成分,不仅在调节先天免疫和病毒感染方面具有优势[19],在促进伤口愈合和抑炎方面也具有重要作用[20]。 模仿H-mEVs 脂质构成在一定程度上可以丰富牛乳基婴幼儿奶粉的营养价值和健康功效。

图5 H-mEVs 和B-mEVs 脂质亚类占比
Fig.5 The proportion of lipid classes in H-mEVs and B-mEVs
2.2.3 H-mEVs 和B-mEVs 差异脂质分子
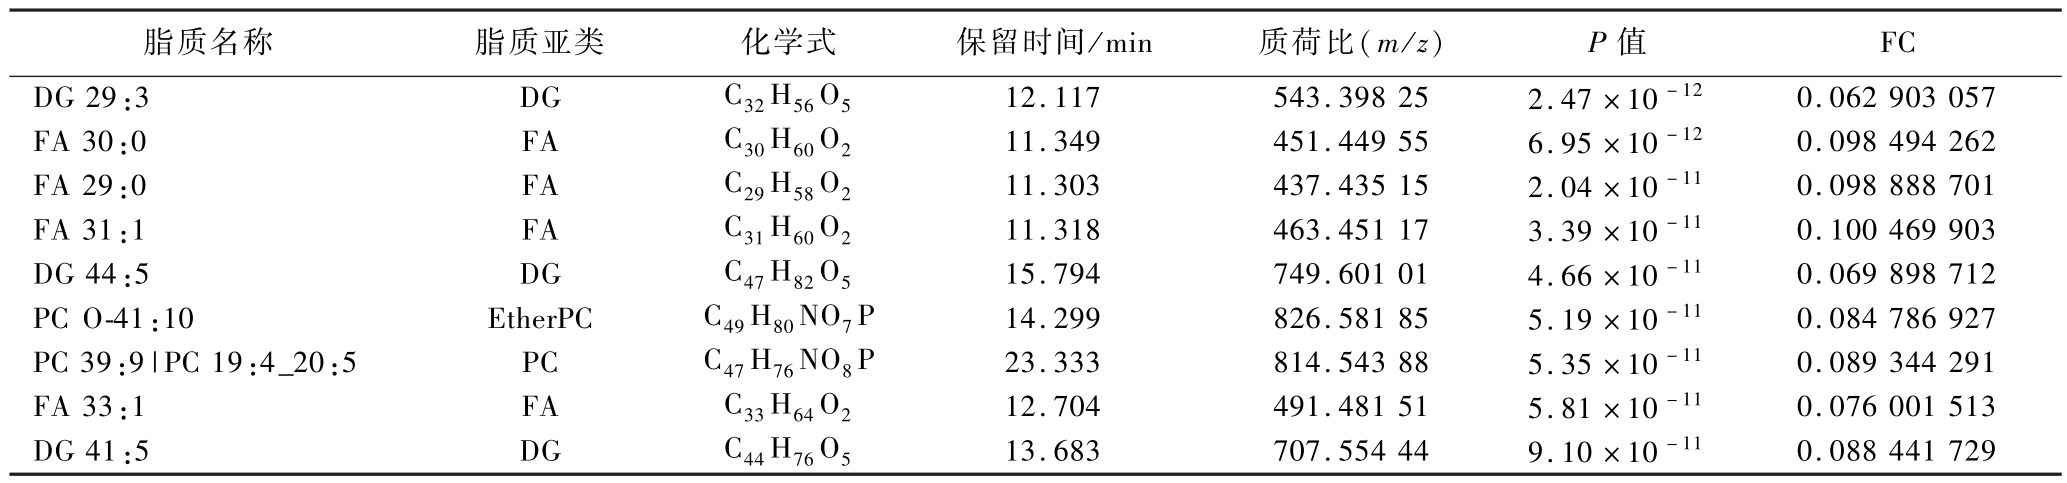
为直观了解H-mEVs 和B-mEVs 这2 组样本代谢物变化情况,以差异倍数(fold change,FC) >1. 5且P <0.05 作为筛选标准对其进行火山图分析(图6)。 结果表明,在脂质分子层面,H-mEVs 和B-mEVs具有较大差异。 以VIP 值>1,P <0.05,且FC >1.5或FC <0. 667 为筛选标准,进一步探究H-mEVs 和B-mEVs 中的差异脂质,共筛选得到405 种差异脂质分子。 其中,H-mEVs 和B-mEVs 差异显著性前10 的脂质分子分别为DG 29:3、FA 30:0、FA 29:0、FA 31:1、DG 44:5、PC O-41:10、PC 39:9|PC 19:4_20:5、PC 35:2、FA 33:1、PC 35:1。 进一步分析发现,H-mEVs有136 种差异脂质分子的相对含量显著高于B-mEVs(P <0.05),差异显著性前10 的脂质分子如表1 所示(按照P 值从低到高排列)。 结果发现H-mEVs 中相对含量高于B-mEVs 的差异脂质与两者共同的差异脂质具有较高的重合度,表明源于H-mEVs 的高表达差异脂质占主导地位,为在婴幼儿配方奶粉补充功能脂质提供了理论依据。
表1 差异脂质分子
Table 1 Differential lipid species
脂质名称脂质亚类化学式保留时间/min质荷比(m/z)P 值FC DG 29:3DGC32 H56 O512.117543.398 252.47 ×10 -120.062 903 057 FA 30:0FAC30 H60 O211.349451.449 556.95 ×10 -120.098 494 262 FA 29:0FAC29 H58 O211.303437.435 152.04 ×10 -110.098 888 701 FA 31:1FAC31 H60 O211.318463.451 173.39 ×10 -110.100 469 903 DG 44:5DGC47 H82 O515.794749.601 014.66 ×10 -110.069 898 712 PC O-41:10EtherPCC49 H80 NO7 P14.299826.581 855.19 ×10 -110.084 786 927 PC 39:9|PC 19:4_20:5PCC47 H76 NO8 P23.333814.543 885.35 ×10 -110.089 344 291 FA 33:1FAC33 H64 O212.704491.481 515.81 ×10 -110.076 001 513 DG 41:5DGC44 H76 O513.683707.554 449.10 ×10 -110.088 441 729
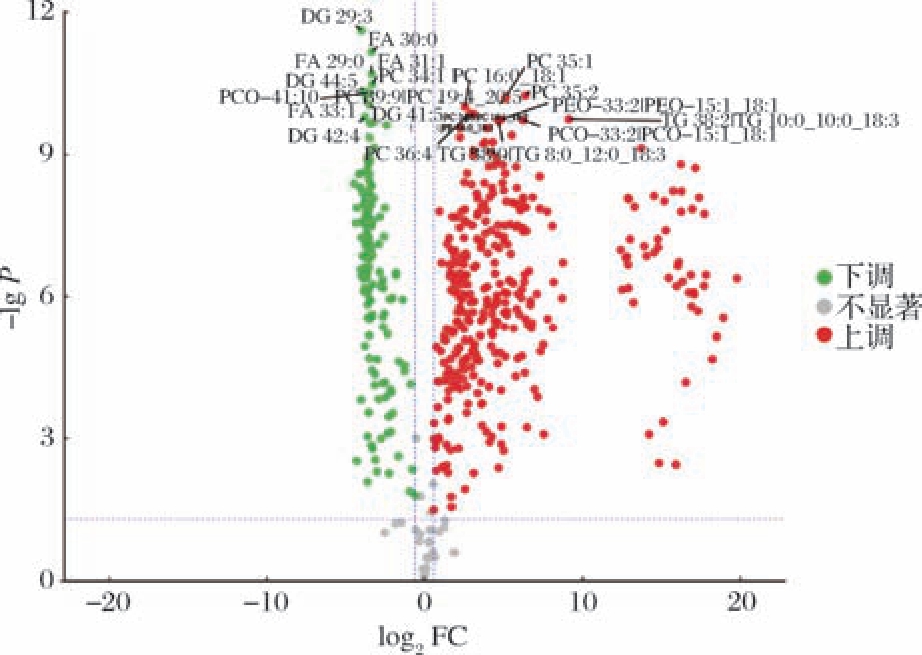
图6 火山图
Fig.6 Volcano plot
2.2.4 H-mEVs 和B-mEVs KEGG 富集分析
将H-mEVs 中显著高于B-mEVs 的136 种差异脂质分子(P <0.05)进行富集分析,以全面了解差异脂质潜在功能。 如图7 所示,差异脂质主要参与到细胞过程、环境信息处理、人类疾病、代谢和有机系统这五大分类。 在代谢通路中主要参与到甘油磷脂代谢、鞘脂代谢、亚油酸代谢、α-亚麻酸代谢、甘油酯代谢、醚脂代谢和花生四烯酸代谢这七类代谢途径。
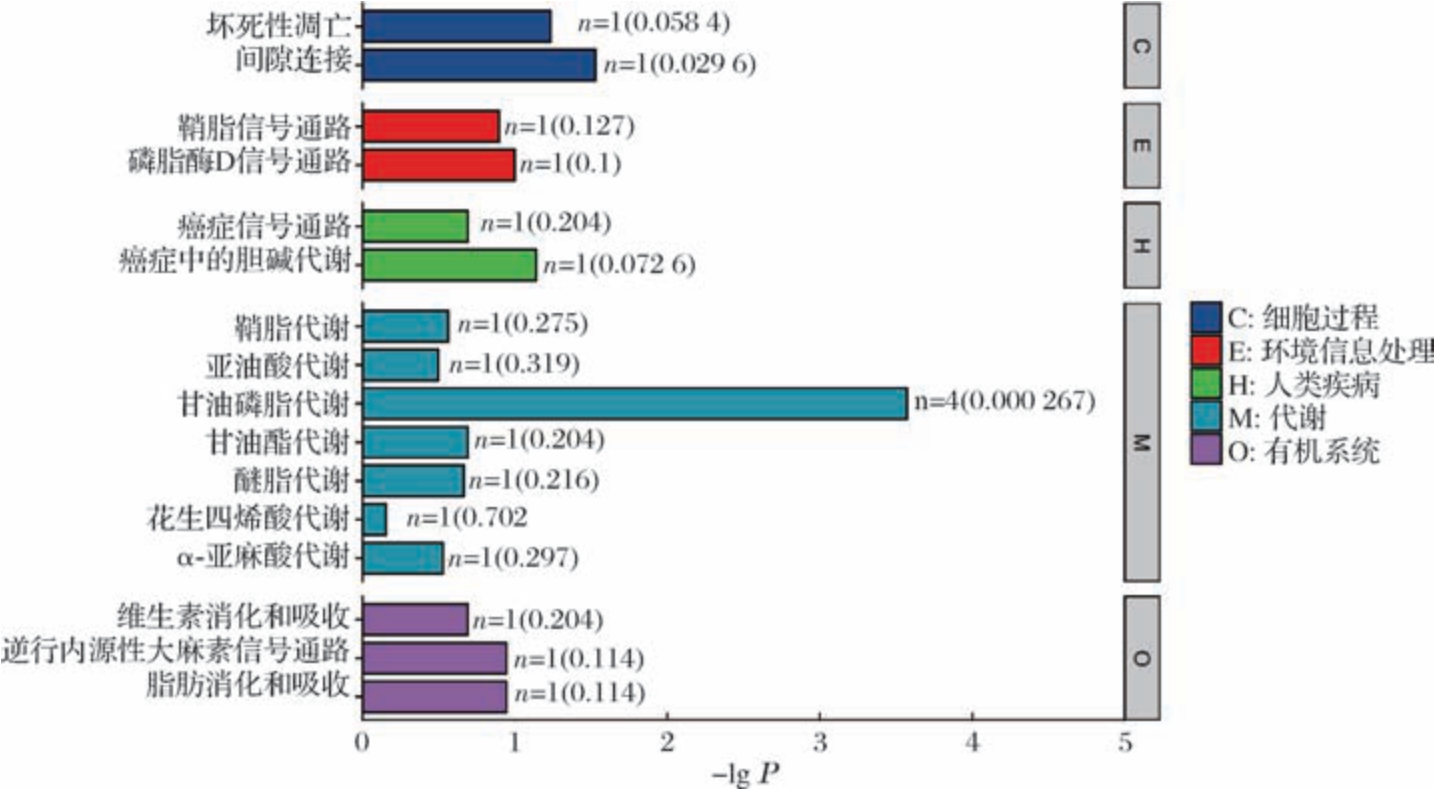
图7 KEGG 通路富集图
Fig.7 KEGG pathway enrichment
甘油磷脂代谢在富集到的代谢通路中为主要的代谢途径。 甘油磷脂代谢途径参与人体免疫、氧化应激等反应。 在甘油磷脂通路中富集到的脂质亚类分别为心磷脂、磷脂酰胆碱、1-酰基-sn-甘油-3-磷酸和2-酰基-sn-甘油-3-磷酸。 有研究表明,心磷脂对哺乳动物早期胚胎活力和神经元的线粒体完整性至关重要[21],其代谢失调可能是多种神经退行性疾病发病机制的关键因素[22];磷脂酰胆碱是肠黏液的重要组成成分,具有缓解黏膜炎症的功效[23]。 与B-mEVs相比,H-mEVs 中含量更高的差异脂质可能通过甘油磷脂代谢通路发挥作用,进一步生成与婴幼儿健康发育相关的PE、PS、PI 等脂质成分。 Margolis 等[24]证实胞外囊泡表面的PS 可以占据PS 受体,从而抵抗外来病毒的入侵;PE 在骨骼肌结构、功能方面发挥着至关重要的作用[25]。
3 结论
本研究通过超速离心法获得 H-mEVs 和B-mEVs,多种检测技术均表明H-mEVs 的粒径显著大于B-mEVs,而B-mEVs 的蛋白含量和颗粒数显著高于H-mEVs。 H-mEVs 和B-mEVs 在脂质亚类和脂质分子水平上均存在较大差异。 在脂质亚类层面上,B-mEVs 有16 种脂质亚类的相对含量显著低于H-mEVs。 在分子层面上,B-mEVs 有136 种脂质分子的相对含量低于H-mEVs,如DG 29:3、FA 30:0等。 对这136 种差异脂质进行代谢途径分析,差异脂质主要参与甘油磷脂代谢途径。 后续应进一步挖掘、添加功能性差异脂质,弥补牛乳基配方奶粉在脂质成分上的不足。 综上,本研究为牛乳基婴幼儿配方奶粉的脂质母乳化研究提供了理论依据。
[1] Carr L E, Virmani M D, Rosa F, et al. Role of human milk bioactives on infants’ gut and immune health[J]. Frontiers in Immunology, 2021, 12:604080.
[2] Wang R, Sun S Y, Zhang Q, et al. Maternal milk orchestrates the development of infant gut microbiota:Implications for health and future research directions[J]. Research, 2025, 8:558.
[3] Duman H, Bechelany M, Karav S. Human milk oligosaccharides:Decoding their structural variability, health benefits, and the evolution of infant nutrition[J]. Nutrients, 2024, 17(1):118.
[4] Hong R Y, Xie A J, Jiang C X, et al. A review of the biological activities of lactoferrin:Mechanisms and potential applications[J].Food & Function, 2024, 15(16):8182 -8199.
[5] Jiang X, You L H, Zhang Z X, et al. Biological properties of milkderived extracellular vesicles and their physiological functions in infant[ J]. Frontiers in Cell and Developmental Biology, 2021,9:693534.
[6] Zempleni J, Aguilar-Lozano A, Sadri M, et al. Biological activities of extracellular vesicles and their cargos from bovine and human milk in humans and implications for infants 1 3[J]. The Journal of Nutrition, 2017, 147(1):3 -10.
[7] Wei W, Jin Q Z, Wang X G. Human milk fat substitutes:Past achievements and current trends[J]. Progress in Lipid Research,2019, 74:69 -86.
[8] Schneider N, Hauser J, Oliveira M, et al. Sphingomyelin in brain and cognitive development:Preliminary data[J]. eNeuro, 2019, 6(4):ENEURO.0421-ENEURO.0418.2019.
[9] Drenckpohl D C, Christifano D N, Carlson S E. Is choline deficiency an unrecognized factor in necrotizing enterocolitis of preterm infants? [J]. Pediatric Research, 2024, 96(4):875 -883.
[10] Wang N, Wang C M, Qi M, et al. Phosphatidylethanolamine improves postnatal growth retardation by regulating mucus secretion of intestinal goblet cells in piglets[J]. Animals, 2024, 14(8):1193.
[11] Tong L J, Hao H N, Zhang Z, et al. Milk-derived extracellular vesicles alleviate ulcerative colitis by regulating the gut immunity and reshaping the gut microbiota[J]. Theranostics, 2021, 11(17):8570 -8586.
[12] Wang S L, De Souza C, Ramachandran M, et al. Lipidomics insight on differences between human MFGM and dietary-derived lipids[J]. Food Chemistry, 2023, 422:136236.
[13] Ran B, Ren X H, Lin X Y, et al. Glycyrrhetinic acid loaded in milk-derived extracellular vesicles for inhalation therapy of idiopathic pulmonary fibrosis [J]. Journal of Controlled Release,2024, 370:811 -820.
[14] Tong L J, Zhang S T, Liu Q Q, et al. Milk-derived extracellular vesicles protect intestinal barrier integrity in the gut-liver axis[J].Science Advances, 2023, 9(15):eade5041.
[15] 毛逸霖, 周俊, 陈凯, 等. 甘油二酯的代谢机制及营养功能研究进展[J]. 中国油脂, 2023, 48(11):80 -89.Mao Y L, Zhou J, Chen K, et al. Research progress on the metabolic mechanism and nutritional function of diacylglycerol[J].China Oils and Fats, 2023, 48(11):80 -89.
[16] Liu N, Li N, Faiza M, et al. Stability and in vitro digestion of high purity diacylglycerol oil-in-water emulsions[J]. LWT,2021,148:111744.
[17] Lu H, Guo T T, Fan Y W, et al. Effects of diacylglycerol and triacylglycerol from peanut oil and coconut oil on lipid metabolism in mice[J]. Journal of Food Science, 2020, 85(6):1907 -1914.
[18] Mao Y L, Zheng D H, He L, et al. The lipid-metabolism-associated anti-obesity properties of rapeseed diacylglycerol oil[J]. Nutrients, 2024, 16(13):2003.
[19] Numata M, Kandasamy P, Nagashima Y, et al. Phosphatidylglycerol suppresses influenza A virus infection[J]. American Journal of Respiratory Cell and Molecular Biology, 2012, 46(4):479 -487.
[20] Bollag W B, Olala L O, Xie D, et al. Dioleoylphosphatidylglycerol accelerates corneal epithelial wound healing [ J]. Investigative Ophthalmology & Visual Science, 2020, 61(3):29.
[21] Falabella M, Vernon H J, Hanna M G, et al. Cardiolipin, mitochondria, and neurological disease[J]. Trends in Endocrinology and Metabolism, 2021, 32(4):224 -237.
[22] Kasahara T, Kubota-Sakashita M, Nagatsuka Y, et al. Cardiolipin is essential for early embryonic viability and mitochondrial integrity of neurons in mammals[J]. FASEB Journal, 2020, 34(1):1465 -1480.
[23] Stremmel W, Weiskirchen R. Phosphatidylcholine in intestinal mucus protects against mucosal invasion of microbiota and consequent inflammation[J]. Livers, 2024, 4(3):479 -494.
[24] Margolis L. Extracellular vesicles block viral entryways[J]. Nature Microbiology, 2024, 9(4):882 -883.
[25] Duncan R E. Deficiency of phosphatidylethanolamine synthesis:Consequences for skeletal muscle[J]. Function, 2023, 4(6):zqad044.