大曲是中国传统白酒酿造过程中的重要成分,在淀粉糖化、酒精发酵和风味产生中起着至关重要的作用[1]。 根据最高发酵温度,大曲主要分为:低温大曲(45 ~50 ℃)、中温大曲(50 ~60 ℃)和高温大曲(60 ~70 ℃)3 种类型,分别常用于生产清香型、浓香型和酱香型白酒[2]。 高温大曲以小麦为原料,通过固态发酵工艺制成,其制作流程包括:粉碎生小麦粒,将粉碎后的小麦与适量水及前批次成熟的母曲混合,塑成砖块,覆盖稻草后堆叠于曲房内进行自然发酵。高温大曲含有大量的微生物和酶,它不仅是酱香型白酒的糖化发酵剂,还贡献了整个发酵过程中近一半的原料,直接影响白酒的产量、风格和质量稳定性[3]。由于大曲发酵过程是在开放环境中进行,曲房内不同物理位置因通风、温湿度等微环境因素的差异,可能导致大曲品质不均一。 然而,目前针对此时间-空间异质性的深层代谢机制解析尚不充分。
目前,多组学方法已经逐渐应用于对高温大曲时空异质性的研究。 例如,刘俊男等[4]通过宏基因组测序技术,发现曲房不同发酵位置(靠门、靠中、靠窗)环境稳定性的差异,导致了高温大曲细菌群落的多样性分布及功能分化;Yang 等[5]通过宏蛋白组学解析高温大曲不同发酵阶段微生物群落的功能特征,发现微生物蛋白质表达水平随发酵进程上升,且一次翻曲(第8 天)是曲层生态位分化关键节点。 Wang 等[6]通过靶向代谢组学等方法,揭示了不同叠层空间环境影响不同颜色高温大曲质量的机制。 Wei 等[3]则基于PacBio 全长16S rRNA 与内转录间隔区(internal transcribed spacer,ITS)序列,结合理化性质、代谢产物与网络共现分析,首次从时间-空间双维视角系统揭示了传统高温大曲代谢产物的差异及其与微生物群落的相关性。 近年来,非靶向代谢组学的出现为高温大曲的研究提供了新的范式。 作为一种基于HPLC、MS 和生物信息学的方法,非靶向代谢组学能够对代谢物进行相对定量,筛选差异代谢物,并预测复杂基质中的代谢途径[7]。 例如,Shi 等[8]基于非靶向代谢组学,发现精氨酸、四甲基吡嗪、丁酸等是区分传统与机械高温大曲的关键差异代谢标志物。
以往关于利用代谢组学方法对高温大曲的研究主要集中在不同工艺[8]、不同发酵时间[5]、不同颜色[9]等,而基于非靶向代谢组学解析机械高温大曲发酵代谢物的时空动态变化的研究仍相对较少。 因此,本研究以机械制曲车间的高温大曲为研究对象,在时间(第0、7、14、40 天)与空间(靠门、靠中、靠窗)双维度上进行系统取样,并采用非靶向代谢组学技术结合KEGG 通路富集分析,旨在阐明由时间、位置微环境引起的代谢通路差异。 本研究为从代谢层面理解高温大曲发酵的时空异质性提供新的思路,并为优化机械制曲工艺、提升大曲品质均一性与稳定性提供理论依据。
1 材料与方法
1.1 材料与试剂
本实验中高温大曲取自四川省泸州市某酱香型白酒机械制曲车间;取样后随即储藏于超低温冰箱-80 ℃条件下,用于后续实验分析。
甲醇、乙腈、甲酸、丙醇、纯水均(色谱纯),美国Thermo Fisher Scientific 公司;L-2-氯苯丙氨酸(分析纯),瑞士Adamas-beta 公司。
1.2 仪器与设备
DW-86L386 超低温冰箱,青岛海尔集团;New-Classic MS 105DU 电子天平,瑞士Mettler-toledo 公司;Orbitrap Exploris 240 超高效液相色谱串联傅里叶变换质谱仪,美国Thermo Fisher Scientific 公司;HSS T3(100 mm ×2.1 mm,1.8 μm)色谱柱,美国Waters公司;SBL-10DT 超声波恒温清洗机,宁波新芝生物科技股份有限公司;JXDC-20 氮吹仪,上海净信实业发展有限公司;LNG-T88 台式快速离心浓缩干燥器,广州市深华生物技术有限公司;Wonbio-800 超高通量组织研磨仪,上海万柏生物科技有限公司;Eppendorf Centrifuge5430R 高速冷冻离心机,德国Eppendorf公司。
1.3 实验方法
1.3.1 样品的采集
分别在高温大曲入房阶段(0 d,D0)、一次翻曲(7 d,D7)、二次翻曲(14 d,D14)、拆曲阶段(40 d,D40)这4 个时间点进行取样。 取样点位如图1 所示,本研究中的曲块样品放置于曲房曲架之上,取样点位于曲房右侧曲架,分别为曲房靠门(M)、靠中(Z)、靠窗(C)3 个不同位置。 每个取样点分别采集沿垂直方向上、中、下同层大曲样本,每个样本3 个平行。 采集后的大曲样品经粉碎并充分混匀后,使用无菌取样袋进行密封,并保存于-80 ℃超低温冰箱中,以备后续代谢物的提取。 其中D0、D7、D14、D40 分别为不同发酵时间样品,M、Z、C 分别为靠门、靠中、靠窗不同发酵位置样品。
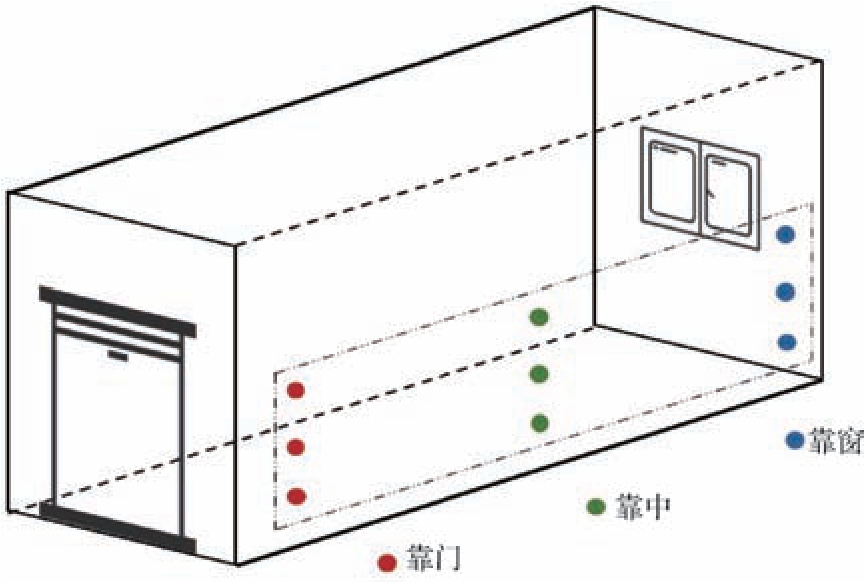
图1 曲房的空间示意图及取样位点
Fig.1 Spatial diagram of the Qu room and sampling location
1.3.2 样本制备
准确称取所取大曲样本100 mg 于2 mL 离心管中,随后内置一颗直径6 mm 的研磨珠,加入800 μL(含内标0.02 mg/mL 的L-2-氯苯丙氨酸)样本提取液(其中甲醇与水的体积比为4∶1)进行代谢物提取。
首先,采用冷冻组织研磨仪在-10 ℃、50 Hz 的条件下对样本溶液进行研磨6 min。 随后,在5 ℃、40 kHz 条件下进行低温超声提取30 min,处理后的样品于-20 ℃环境中静置30 min,再转入离心机在4 ℃条件下以13 000 × g 的转速离心15 min。 取上清液至进样小瓶(含内插管)中进行分析。
1.3.3 液相色谱(liquid chromatography,LC)条件
进样量为3 μL,色谱柱为HSS T3(100 mm×2.1 mm,1.8 μm),流速为0.40 mL/min,柱温为40 ℃。
流动相A:V[乙腈(含0.1%体积分数甲酸)]∶V(水) =19∶1;流动相B:V(乙腈)∶V(异丙醇)∶V[水(含0.1%甲酸)] =9.5∶9.5∶1。
线性洗脱程序如下:0 ~5 min(95% ~35% A、5% ~65% B);5 ~6 min(35% ~1% A、65% ~99%B);6 ~7.5 min(1% A、99% B);7.5 ~7.6 min(1% ~95% A、99% ~5% B);7.6 ~10 min(95% A、5% B)。
1.3.4 MS 条件
MS 信号使用正负离子扫描模式,数据采集使用DDA 模式。 扫描范围:70 ~1 050 m/z,鞘气:50 psi,辅助加热气:13 psi,正模式离子喷雾电压:3 500 V,负模式离子喷雾电压:-3 500 V,离子源加热温度:450 ℃,碰撞能:20、40、60 V 循环阶梯归一化碰撞能。一级质谱分辨率:60 000,二级质谱分辨率:7 500。
1.4 数据处理
本研究采用分析软件Progenesis QI(Waters Corporation,Milford,USA)对LC-MS 原始数据进行处理。主要通过以下步骤:基线过滤、峰识别与积分、保留时间校正及峰对齐等。 将获取的MS 和MS/MS 质谱数据与代谢公共数据库HMDB(http:/ /www. hmdb.ca/)、Metlin(https:/ /metlin. scripps. edu/)以及美吉自建库进行匹配与鉴定。 搜库后的数据矩阵上传至美吉云平台(cloud.majorbio.com)进行后续处理与分析。 采用R 语言中的ropls 包(Version 1.6.2)进行主成分分析(principal component analysis,PCA)。
代谢物信息通过美吉云平台(cloud. majorbio.com)进行分析以及绘图,通过PCA、正交偏最小二乘判别分析(orthogonal partial least squares discriminant analysis,OPLS-DA)模型再结合变量投影重要性(variable importance in the projection,VIP)(VIP 值>1)、T检验(P <0.05)、差异倍数(fold change,FC,FC≥2 和FC≤0.5)来筛选出显著差异代谢物;结合KEGG 数据库(https:/ /www. kegg. jp/kegg/pathway. html)对差异代谢物的代谢通路进行注释解析;使用Python 软件包scipy. stats 进行通路富集分析;使用Graphpad 2024 软件制作堆叠柱状图。
2 结果与分析
2.1 代谢物结构组成
研究采用超高效液相色谱-质谱(ultra-high-performance liquid chromatography-tandem mass spectrometry,UPLC-MS/MS)联用技术对大曲样品进行代谢物谱分析,通过HMDB 数据库共鉴定出机械高温大曲样品代谢物19 类、4 778 种,如图2 所示,具体以脂质及类脂分子1 213 种、有机酸及其衍生物1 064 种、有机杂环化合物709 种、有机氧化物474 种、苯丙素类和聚酮类365 种、苯环型化合物353 种、核苷酸和类似物134 种、生物碱及其衍生物93 种、有机氮化合物47 种、木质素、新木脂素和相关化合物22 种、有机聚合物11 种、有机卤素化合物5 种以及其他化合物288 种构成。

图2 机械高温大曲中鉴定出的代谢物种类
Fig.2 Metabolite classes identified in mechanically produced high-temperature Daqu
注:lipids and lipid-like molecules:脂质及类脂分子;organic acids and derivative:有机酸及其衍生物;organoheterocyclic compounds:有机杂环化合物;organic oxygen compounds:有机氧化物;phenylpropanoids and polyketide:苯丙素类和聚酮类;benzenoids:苯环型化合物;not available,不可用;nucleosides,nucleotides,and analogues:核苷酸和类似物;alkaloids and derivatives:生物碱及其衍生物;organic nitrogen compounds:有机氮化合物;lignans,neolignans and related compounds:木质素、新木脂素和相关化合物;organic polymers:有机聚合物;organohalogen compounds:有机卤素化合物;hydrocarbons:烃类;organosulfur compounds:有机硫化合物;homogeneous non-metal compounds:均质非金属化合物;hydrocarbon derivatives:烃类衍生物;organic 1,3-dipolar compounds:有机1,3-偶极化合物;organophosphorus compounds:有机磷化合物;lipids:脂质;organic acids:有机酸;peptides:肽;carbohydrates:碳水化合物;hormones and transmitters:激素和神经递质;vitamins and cofactors:维生素和辅助因子;antibiotics:抗生素;nucleic acids:核酸;steroids:甾体类物质;phospholipids:磷脂;eicosanoids:类二十烷酸;fatty acids:脂肪酸;glycolipids:糖脂;carboxylic acids:羧酸;amino acids:氨基酸;amines:胺;peptides:肽;monosaccharides:单糖;oligosaccharides:低聚糖;steroid hormones:类固醇激素;neurotransmitters:神经递质;peptide hormones:肽激素;vitamins:维生素;polyketides and nonribosomal peptides:聚酮化合物和非核糖体肽;β-lactams:β-内酰胺类抗生素;aminoglycosides:氨基糖苷类抗生素;24-carbon atoms:二十四烷。
KEGG 数据库是一个强大的工具,用于进行生物体内的代谢分析和代谢网络映射,并提供了代谢物的生物学功能分类信息。 通过对不同发酵时间及其不同空间位置的机械高温大曲样品进行注释,发现样品代谢物组成以脂类111 种,有机酸21 种,肽类30 种、碳水化合物17 种,激素和传递介质20 种等为主,这与图2-A 中的描述具有相似的结论。
2.2 不同发酵时间以及不同位置机械高温大曲代谢物比较分析
为判断不同发酵时间位置高温大曲的代谢物之间是否具有差异,基于代谢物质种类对不同发酵时间、空间点机械高温大曲中代谢物进行PCA,并通过adonis 组间差异检验,分析不同分组因素对样品差异的解释度,且使用置换检验对划分的统计学意义进行显著性分析,分析结果如图3 所示。 图中横坐标(PC1)代表第一主成分,方差贡献率为35.40%;纵坐标(PC2)代表第二主成分,方差贡献率为20.90%,累计方差贡献率为56.30%,其中R2 =0.945 3,P =0.001,组间总体差异显著。 在PC1 上,第7 天靠中位置与第40 天靠中、靠窗位置呈现极显著差异(P <0. 001),在PC2 上,第7 天靠中位置与第40 天靠中、靠窗位置呈现非常显著差异(P <0.01),其余不同组别间均呈现显著差异(P <0.05)。
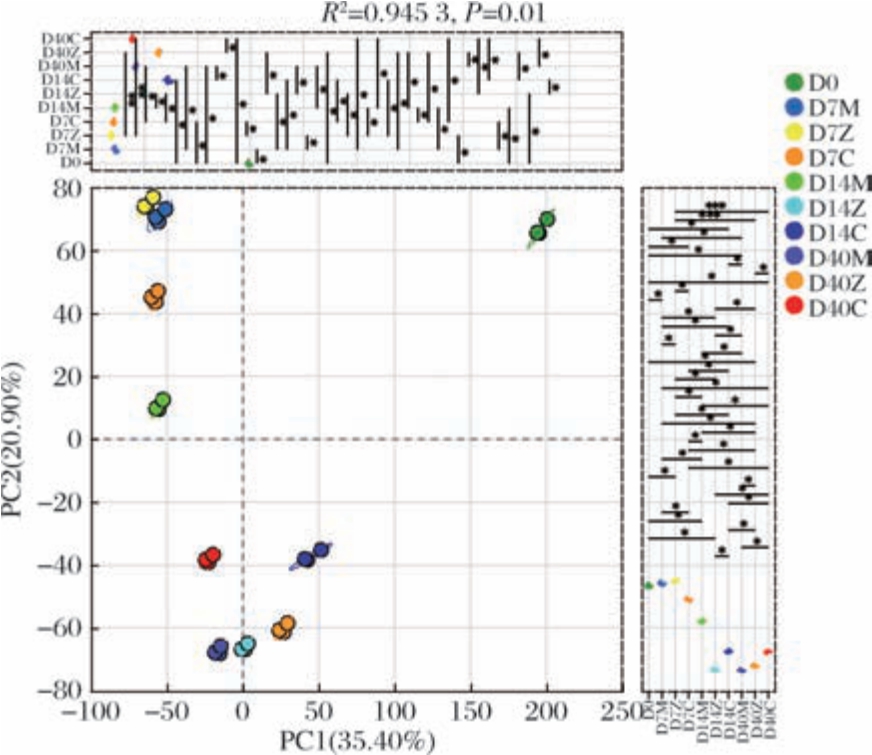
图3 不同发酵时间、空间点机械高温大曲中代谢物PCA
Fig.3 PCA of metabolites in mechanical high-temperature Daqu at different fermentation times and spatial points
以上结果表明,机械高温大曲发酵过程中代谢物组成随时间发生显著变化,同时空间位置(门、中、窗)也影响着其组成,反映了机械高温大曲在发酵过程中的环境位置异质性。
选取丰度前20 的代谢物对不同发酵时间以及不同空间位置进行聚类分析,其聚类热图如图4 所示。时间尺度上,随着发酵进行,3′-脱氧胸苷,吡咯啉羟基羧酸等代谢物逐渐上调,其中吡咯啉羟基羧酸精氨酸和脯氨酸代谢,而4-氯-L-苯丙氨酸、丁二酸二辛酯、己胺等代谢物在不同时间节点呈现逐渐降低趋势。 空间尺度上,第14 天不同空间位置代谢产物差异最为显著,2-羟基苯乙胺、L-异亮氦酸、环戊胺、反式肉桂酸等代谢物在靠中位置显著低于靠窗、靠门位置,其中L-异亮氦酸参与缬氨酸、亮氨酸和异亮氨酸降解和生物合成,氨基酸生物合成,鸟氨酸、赖氨酸和烟酸生物碱的生物合成等重要代谢通路,可显著提高复合酵母菌发酵果酒中的活性戊醇、2-苯乙醇及其乙酸酯等风味物质的浓度[10],而反式肉桂酸则具有抗氧化活性[11]。 而如3-庚炔基-4-羟基苯甲酸酯等代谢物在靠门位置显著低于靠中、靠窗位置。
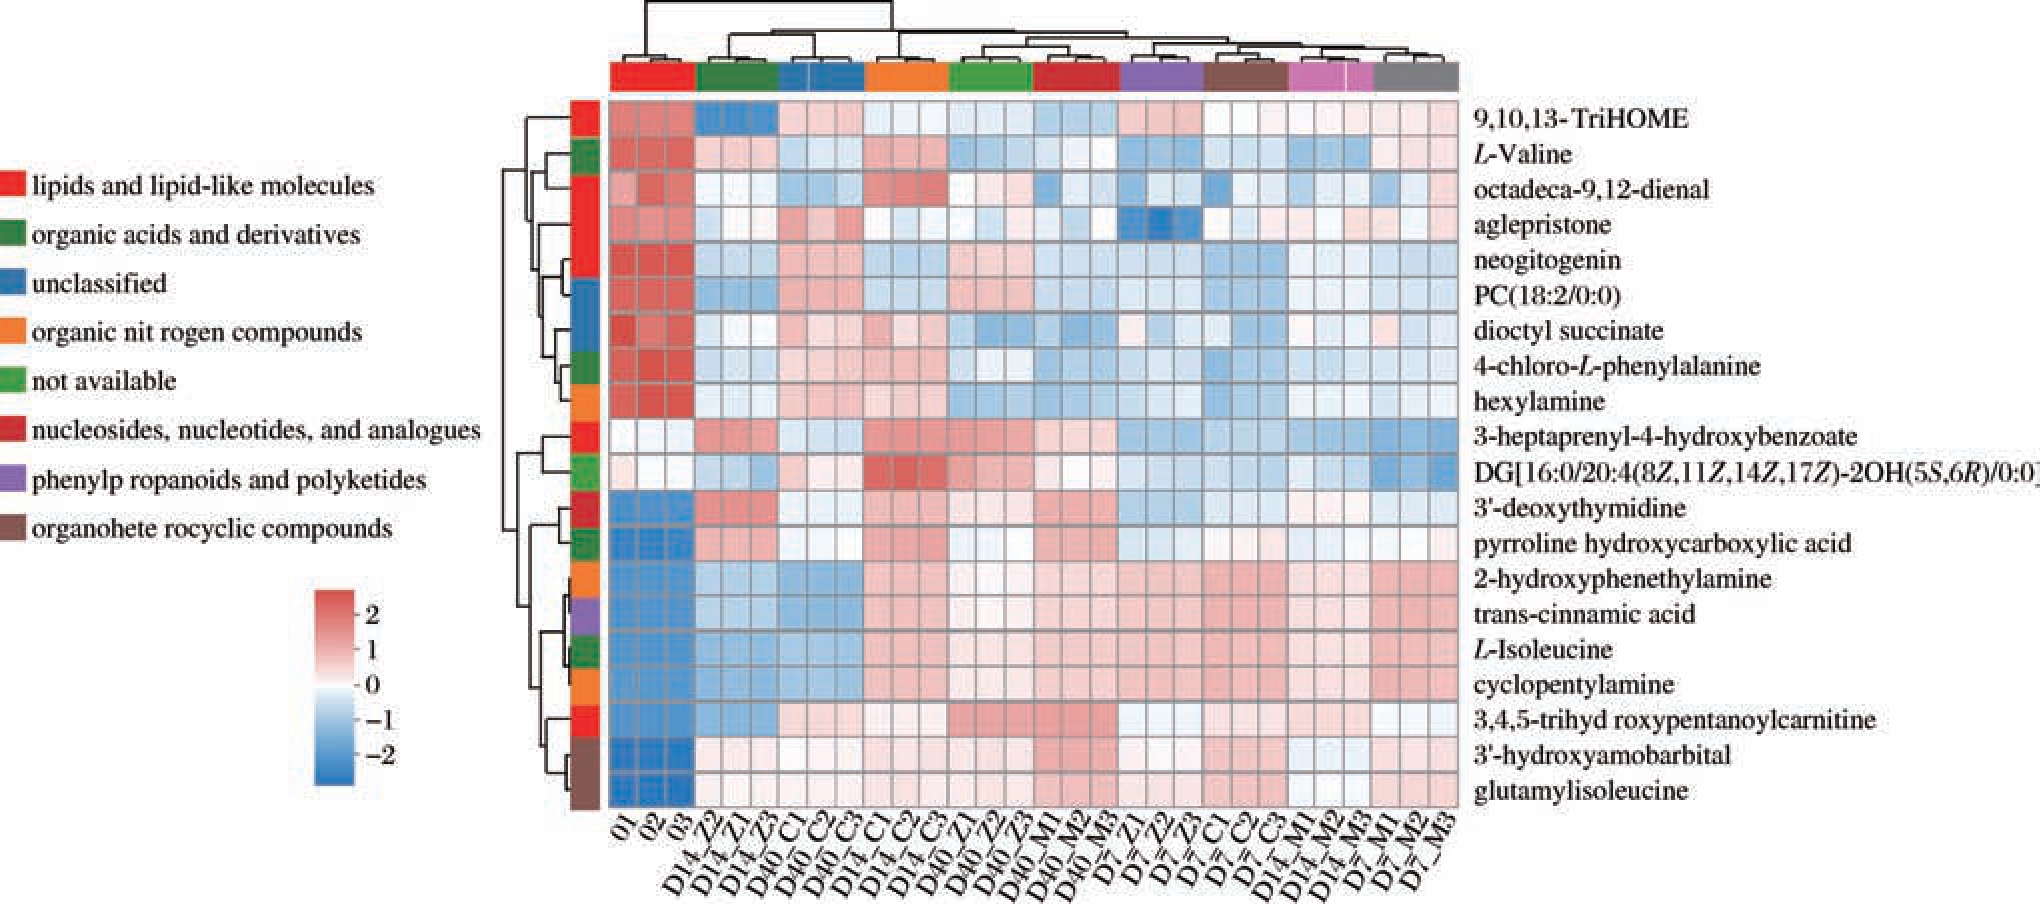
图4 不同发酵时间、空间点机械高温大曲中代谢物聚类分析热图
Fig.4 Heatmap of metabolite clustering analysis in mechanically high-temperature Daqu at different fermentation times and spatial points
注:unclassified:未分类;9,10,13-TriHOME:9,10,13-三羟甲基苯;L-Valine:L-缬氨酸;octadeca-9,12-dienal:二十碳-9,12-二烯醛;aglepristone:安哥司酮;neogitogenin:新芰脱皂甙元;dioctyl succinate:癸二酸二正辛酯;4-chloro-L-phenylalanine:4-氯-L-苯丙氨酸;hexylamine:己胺;3-heptaprenyl-4-hydroxybenzoate:3-庚炔基-4-羟基苯甲酸酯;3′-deoxythymidine:3′-脱氧胸苷;pyrroline hydroxycarboxylic acid:吡咯啉羟基羧酸;2-hydroxyphenethylamine:2-羟基苯乙胺;trans-cinnamic acid:反式肉桂酸;L-Isoleucine:L-异亮氨酸;cyclopentylamine:环戊胺;3,4,5-trihydroxypentanoylcarnitine:3,4,5-三羟基戊酰基肉碱;3′-hydroxyamobarbital:3′-羟基氨巴比妥;glutamylisoleucine:谷氨酰异亮氨酸。
2.3 差异代谢物筛选及其通路富集分析
2.3.1 不同发酵时间差异代谢物筛选及通路富集分析
为了解不同发酵时间样本代谢物组成的差异情况,选取差异倍数FC≥2 和FC≤0.5、P <0.05、VIP值>1 的代谢物为显著差异代谢物[12],不同发酵时间点机械高温大曲中差异代谢物的火山图如图5 所示。 火山图中的每个数据点对应一个代谢物。 其水平轴表示组间表达差异的倍数[以log2(FC)转换],该值的绝对值越大,意味着代谢物的表达量差异越显著;垂直轴则为显著性水平(以- lg P 值表示),该值越大,表明组间差异的统计学意义越强。 基于不同发酵时间,D0 与D7、D7 与D14、D14 与D40 相邻两时间节点间显著差异代谢物数量分别为517、76、37,表明时间尺度上代谢物变化差异集中在发酵前期。

图5 不同发酵时间点机械高温大曲中代谢物的差异分析火山图
Fig.5 Volcano plot of metabolite differences in mechanical high-temperature Daqu at different fermentation time points
注:以D0 与D7 为例,其表示为第0 天与第7 天相比(下同)。
其中D0 与D7 样品,有472 种代谢物下调,45 种代谢物上调,超90%差异代谢物显著下调,即发酵初期,代谢物数目显著降低,该变化主要集中在脂质及类脂分子、有机酸及其衍生物、有机杂环化合物等代谢物上,包括组氨酰脯氨酸酰胺、大麦芽碱B、鹅去氧胆酰瓜氨酸等。 D7 与D14 样品,有32 种代谢物下调,44 种代谢物上调,该变化主要集中在有机酸及其衍生物、脂质及类脂分子、有机杂环化合物等代谢物上,如L-己酰基肉碱、丙氨酰色氨酸等。 D14 与D40样品,有19 种代谢物下调,18 种代谢物上调,主要集中在有机杂环化合物、有机酸及其衍生物、苯丙素类和聚酮类上,如苯丙氨酰谷氨酰胺、3-氧代癸酸等。
不同发酵时间点间显著差异代谢物中的组氨酰脯氨酸酰胺是一种反应性酰胺,是组氨酸代谢途径中的重要中间体,而组氨酸在高温发酵阶段一部分经降解或转氨基反应生成α-二羰基和含氮小分子,为吡嗪类风味物质提供前体[13];丙氨酰色氨酸由丙氨酸和色氨酸通过肽键连接而成的二肽,其中丙氨酸含量是导致3 种不同颜色大曲功能差异,以及影响高温大曲的风味、发酵过程酵母氮代谢的因素之一[14];丙氨酰谷氨酰胺是由苯丙氨酸和谷氨酰胺通过肽键连接形成的二肽,而苯丙氨酸则可作为高级醇的前体物质,同时也是影响乙醇的生成的重要物质[15]。
总体而言,可以根据不同发酵时间间差异代谢物种类变化趋势将整个发酵过程划分为0 ~7 d 和7 ~40 d 两阶段,而区分其时间差异的代谢物种类为有机酸及其衍生物、脂质及类脂分子、有机杂环化合物、丙素类和聚酮类等。 不同发酵时间间均含有的差异代谢物种类包括有机酸及其衍生物、脂质及类脂分子、有机杂环化合物;具体不同时间节点间主要差异代谢物种类及其上/下调数量如表1 所示。
表1 不同时间节点间主要差异代谢物种类及其上下调数量
Table 1 Types of key differentially expressed metabolites and their up- or down-regulated numbers across different time points
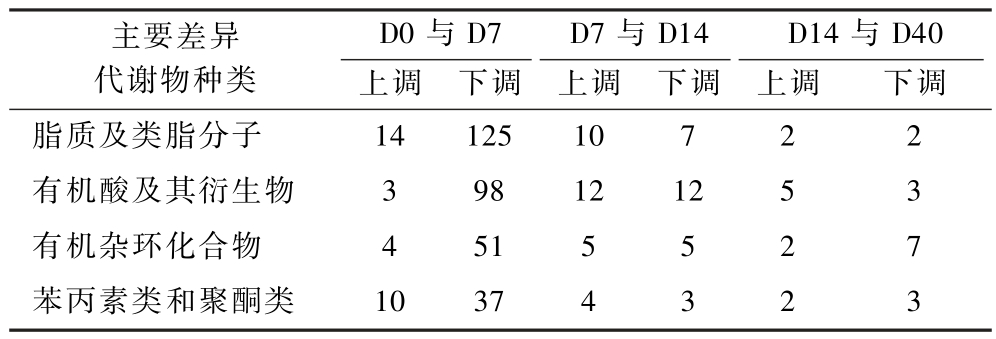
主要差异代谢物种类D7 与D14 D0 与D7 D14 与D40上调 下调 上调 下调 上调下调脂质及类脂分子1412510722有机酸及其衍生物398121253有机杂环化合物4515527苯丙素类和聚酮类10374323
注:以D0 与D7 为例,其表示为第0 天与第7 天相比(下同)。
为进一步了解不同发酵时间点间差异代谢物的功能信息,通过KEGG 数据库将差异代谢物进行通路富集分析。 如图6 所示,图中每个气泡表示1 个KEGG 代谢通路;横坐标用Impact 值表示代谢物在通路中的相对重要性,气泡大小代表Impact 值,气泡越大表示通路重要性越大;纵坐标表示代谢物参与通路的富集显著性,P <0.05 代表该途径显著。

图6 不同发酵时间点机械高温大曲差异代谢物KEGG 富集通路
Fig.6 KEGG enrichment pathways of differentially metabolized compounds in high-temperature Daqu at different fermentation time points
注:glycerophospholipid metabolism:甘油磷脂代谢;purine metabolism:嘌呤代谢;nucleotide metabolism:核苷酸代谢;phenylpropanoid biosynthesis:苯丙烷生物合成;biosynthesis of siderophore group nonribosomal peptides:铁载体基团非核糖体肽的生物合成;porphyrin metabolism:卟啉与叶绿素代谢;drug metabolism-cytochrome P450:药物代谢-细胞色素P450;glycerolipid metabolism:甘油脂代谢;biosynthesis of cofactors:辅助因子的生物合成;flavonoid biosynthesis:类黄酮生物合成;degradation of flavonoids:黄酮类化合物的降解。
结果表明,其中D0 与D7 比较组中的517 种差异代谢物富集到171 条代谢通路,其中Impact 值>0的显著富集通路(P <0.05)有5 条,分别为:甘油磷脂代谢、黄酮和黄酮醇生物合成、核苷酸代谢、玉米素生物合成、嘌呤代谢;D7 与D14 比较组中的76 种差异代谢物富集到28 条代谢通路,其中Impact 值>0的显著富集通路(P <0.05)有2 条,分别为:甘油磷脂代谢、卟啉代谢;D14 与D40 比较组中的37 种差异代谢物富集到4 条代谢通路,其中Impact 值>0 的显著富集通路(P <0.05)有2 条,分别为类黄酮生物合成、黄酮类化合物的降解。
代谢通路富集分析显示,高温大曲发酵前中期甘油磷脂代谢显著富集,磷脂酰胆碱类物质是甘油磷脂的合成代谢途径中的重要产物,其结构中的不饱和脂肪酸链在发酵过程中发生酶解反应,生成多种游离脂肪酸,为白酒中醛、酮、醇等重要风味化合物提供脂质前体[16],黄酮和黄酮醇的生物合成在发酵中后显著富集,这可能是由于曲霉等真菌群落在后期的丰度高于前中期,而真核微生物更有利于黄酮类化合物的合成[17-18]。 前7 d 处于高温大曲入房初期,其微生物群落以热嗜好菌为主,其中芽孢杆菌属(Bacillus),尤其是贝莱斯芽胞杆菌(Bacillus velezensis)、解淀粉芽孢杆菌(Bacillus amyloliquefaciens)、枯草芽孢杆菌(Bacillus subtilis),以及链霉菌属(Streptomyces)、克罗彭斯特菌属(Kroppenstedtia)、嗜热子囊菌属(Thermoascus)等占优势[19],这些菌株均拥有完整Surfactin 合成NRPS 基因簇,能够翻译产生SrfAB 等合成酶;胞内脂质与类脂代谢物提供脂肪酸前体,与氨基酸共同作为底物,在NRPS 催化下合成多种脂肽次级代谢物[20]。
2.3.2 不同发酵位置差异代谢物筛选及通路富集分析
如图7 为发酵过程中靠门(M)、靠中(Z)、靠窗(C)位置独有代谢物的种类数目堆叠柱状图,其中靠门位置独有代谢物有49 种,主要以有机酸及其衍生物和脂质及类脂分子为主,占比近43%;靠中位置独有代谢物有78 种,主要以脂质及类脂分子、苯丙素类和聚酮类、有机杂环化合物为主,占比近65%;靠窗位置独有代谢物有42 种,主要以有机酸及其衍生物、苯丙素类和聚酮类、有机杂环化合物、脂质及类脂分子为主,占比近71%。
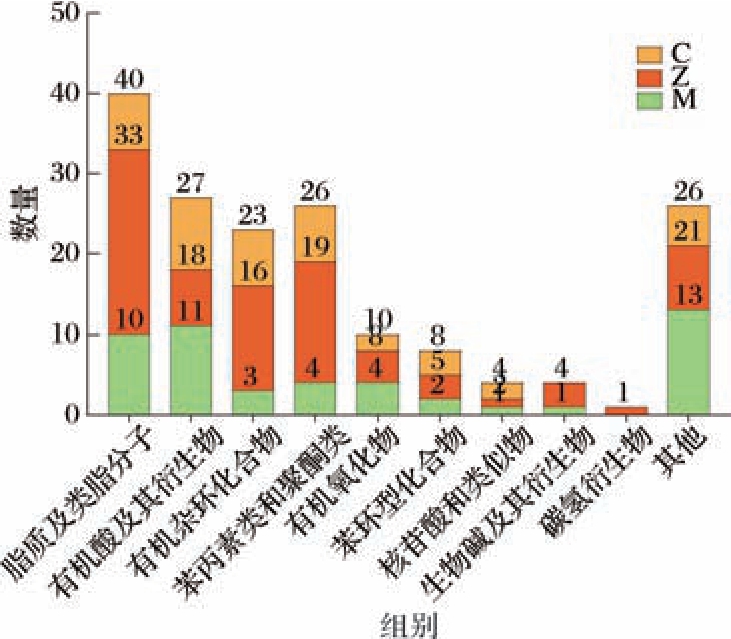
图7 发酵过程中不同位置机械高温大曲独有代谢物的种类数目堆叠柱状图
Fig.7 Stacked bar chart showing the number of unique metabolites produced by mechanically processed high-temperature Daqu at different stages during fermentation
生产过程中开关门窗是调控微生态环境的主要措施[21],有机酸及其衍生物在靠门与靠窗的种类显著高于靠中位置,这可能是由于通风优良性导致靠门与靠窗位置的氧气含量高于靠中位置,如醋酸杆菌属(Acetobacter)等好氧细菌在有氧条件下进行氧化代谢,消耗乙醇产生乙酸等有机酸及其衍生物[22];另一方面,曲房内靠中位置温度明显高于靠门位置和靠窗位置,且耐高温细菌属如高温放线菌属(Thermoactinomyces)在靠中位置的丰度明显高于靠门位置和靠窗位置[4],而随着温度升高,Thermoactinomyces 中直链脂肪酸合成通路显著上调[23],促进直链饱和脂肪酸大量生成;直链饱和脂肪酸作为脂质与类脂最核心的结构单元之一,其含量提升促使靠中位置脂质与类脂分子显著增加。
由于不同发酵时间高温大曲代谢物组成相差较大,继续选取FC≥2 和FC≤0.5、P <0.05、VIP >1 的代谢物为显著差异代谢物,基于不同时间不同发酵位置,靠门、靠中、靠窗位置之间的差异代谢物数量以及其上下调具体情况,如表2 所示。
表2 不同时间不同发酵位置间差异代谢物及其上下调数量
Table 2 Differentially expressed metabolites and their up-or downregulated counts across different fermentation positions at various time points
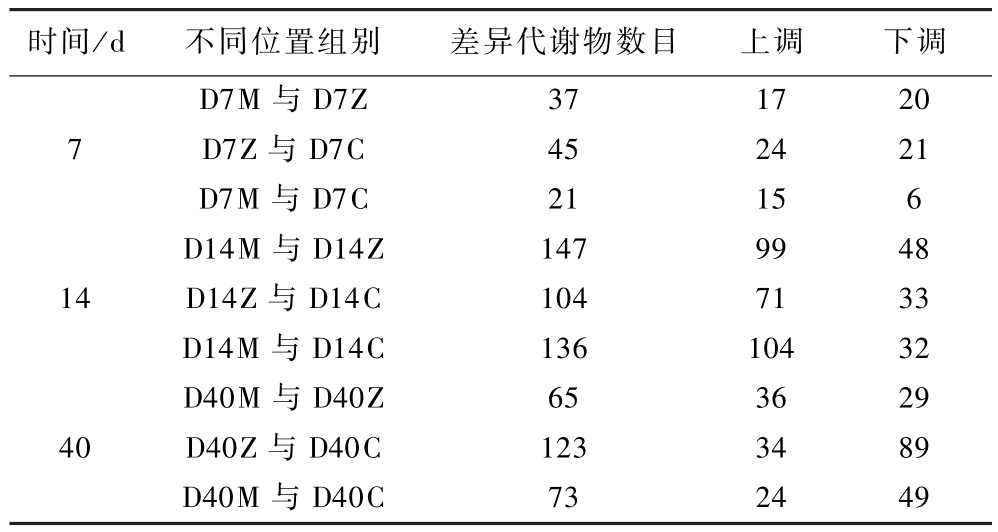
时间/d不同位置组别差异代谢物数目上调下调D7M 与D7Z371720 7D7Z 与D7C452421 D7M 与D7C21156 D14M 与D14Z1479948 14D14Z 与D14C1047133 D14M 与D14C13610432 D40M 与D40Z653629 40D40Z 与D40C1233489 D40M 与D40C732449
其中第7 天不同发酵位置间差异代谢物数目较少,D7M 与D7Z 比较组中共鉴定出37 种差异代谢物,主要以脂质及类脂分子、有机氧化物等为主,显著差异代谢物主要为大豆甾醇E、UDP-N-乙酰基-D-甘露糖胺、木二糖等;D7Z 与D7C 比较组中共鉴定出45种差异代谢物,主要以有机杂环化合物、脂质及类脂分子为主,显著差异代谢物主要为甲苯那酸、UDP-N-乙酰基-D-甘露糖胺、木二糖等;而D7M 与D7C 比较组中共鉴定出21 种差异代谢物,主要以有机杂环化合物、苯丙素类和聚酮类为主,显著差异代谢物主要为甲苯那酸、枸橼酸等。 综上可知,甲苯那酸、UDPN-乙酰基-D-甘露糖胺、木二糖等代谢物是发酵初期不同发酵空间位置的主要差异代谢物。 其中木二糖经水解得到木糖后,进一步通过还原反应可转化为木糖醇,而木糖醇被确认是重要的非挥发性甜味成分之一,是酱香型白酒中甜味物质之一[24]。
不同发酵时间下不同位置间差异代谢物数目差异最大的为第14 天,其不同发酵位置机械高温大曲中差异代谢物的火山图如图8 所示。 其中D14M 与D14Z、D14Z 与D14C、D14M 与D14C 比较组间差异代谢物数目分别为147、104、136,且上调数目均大于下调数目,表明其代谢物组成随着位置由外到内依次增加。 D7M 与D7Z、D14Z 与D14C、D7Z 与D7C 比较组中主要差异代谢物均以脂质及类脂分子以及有机酸及其衍生物为主,显著差异代谢物包括谷氨酰赖氨酸、N-硬脂酰半胱氨酸、苯丙氨酰谷氨酰胺等。 谷氨酰赖氨酸是氨基酸代谢过程中形成的二肽,由谷氨酸和赖氨酸组成,氨基酸是发酵系统中的重要组成部分,是微生物吸收的主要营养物质,仅次于碳化合物;另外氨基酸也是合成挥发性化合物的前体,对酒体的风味和香气有着显著贡献[25]。 N-硬脂酰半胱氨酸是半胱氨酸经过脂肪酰化修饰后的衍生物,而半胱氨酸可通过参与多种代谢途径、产物合成及信号传导,对酿酒酵母(Saccharomyces cerevisiae)的生长、代谢与基因表达进行精准调控[26]。

图8 第14 天不同发酵位置机械高温大曲中差异代谢物的火山图
Fig.8 Volcano plot of differential metabolites in mechanically high-temperature Daqu at different fermentation positions on day 14
注:以D14M 与D14Z 为例,其表示为第14 天靠门位置与第14 天靠中位置相比(下同)。
第40 天时,不同位置间仍存在少量差异,D40M与D40Z、D40Z 与D40C、D40M 与D40C 比较组间差异代谢物数目分别为65、123、73,其中D40M-D40Z、D40Z-D40C 比较组主要差异代谢物均以脂质及类脂分子以及有机酸及其衍生物为主,包括灰绿曲霉酰胺、谷氨酰羟脯氨酸等,高温大曲优势功能真菌属包括曲霉属(Aspergillus)等[27],其中灰绿曲霉酰胺为灰绿曲霉(Aspergillus glaucus)的次级代谢产物。
综上,不同发酵位置间的代谢物显著差异大小为第14 天>第40 天>第7 天。 在发酵开始时,大曲约90%以上的细菌来自原料(小麦、稻谷等),而真菌则主要来源于室外地面或曲房空气[28],微生物群落尚未完全定殖,早期各层微生物群落差异不显著,从而可能导致其代谢较为缓慢;而发酵中后期,微生物群落的快速增殖以及各层之间微生物结构出现明显分化[3],从而导致其代谢活动增强;在发酵温度持续上升的过程中,耐热性较差的菌种的丰度显著下降;当发酵阶段结束进入贮藏期时,整个微生物群落的组成则趋于稳定[29],如发酵结束时大曲原料——小麦负责通过RQ-4(呼吸熵)的作用稳定微生物演替和代谢产物的产生[30],从而导致差异代谢物的减少。
以上研究结果表明,发酵中期(即第14 天)为不同发酵位置间差异代谢物表达最为活跃的时间段,为进一步了解不同发酵位置间差异代谢物的功能信息,通过KEGG 数据库对第14 天间差异代谢物进行通路富集分析。 如图9 所示,结果表明,其中D14M 与D14Z比较组中的147 种差异代谢物被富集到24 条差异显著代谢通路中,其中Impact 值>0 的极显著富集通路(P <0.05)有3 条,分别为:O-抗原核苷酸糖生物合成、氨基糖和核苷酸糖代谢、甘油磷脂代谢;D14Z 与D14C 比较组中的104 种差异代谢物被富集到22 条差异显著代谢通路中,其中Impact 值>0 的极显著富集通路(P <0.05)有3 条,分别为:甘油磷脂代谢、O-抗原核苷酸糖生物合成、氨基糖和核苷酸糖代谢;D14M 与D14C 比较组中的136 种差异代谢物被富集到13 条差异显著代谢通路中,其中Impact 值>0 的极显著富集通路(P <0.05)有2 条,分别为甘油磷脂代谢、二萜生物合成;代谢通路富集分析显示,O-抗原核苷酸糖生物合成、氨基糖和核苷酸糖代谢、甘油磷脂代谢在第14 天相邻位置间均被显著富集,而二萜生物合成在D14M 与D14C 比较组中显著富集。二萜为萜类化合物的1 种,对果酒、白酒及啤酒的香气均有重要贡献[31]。
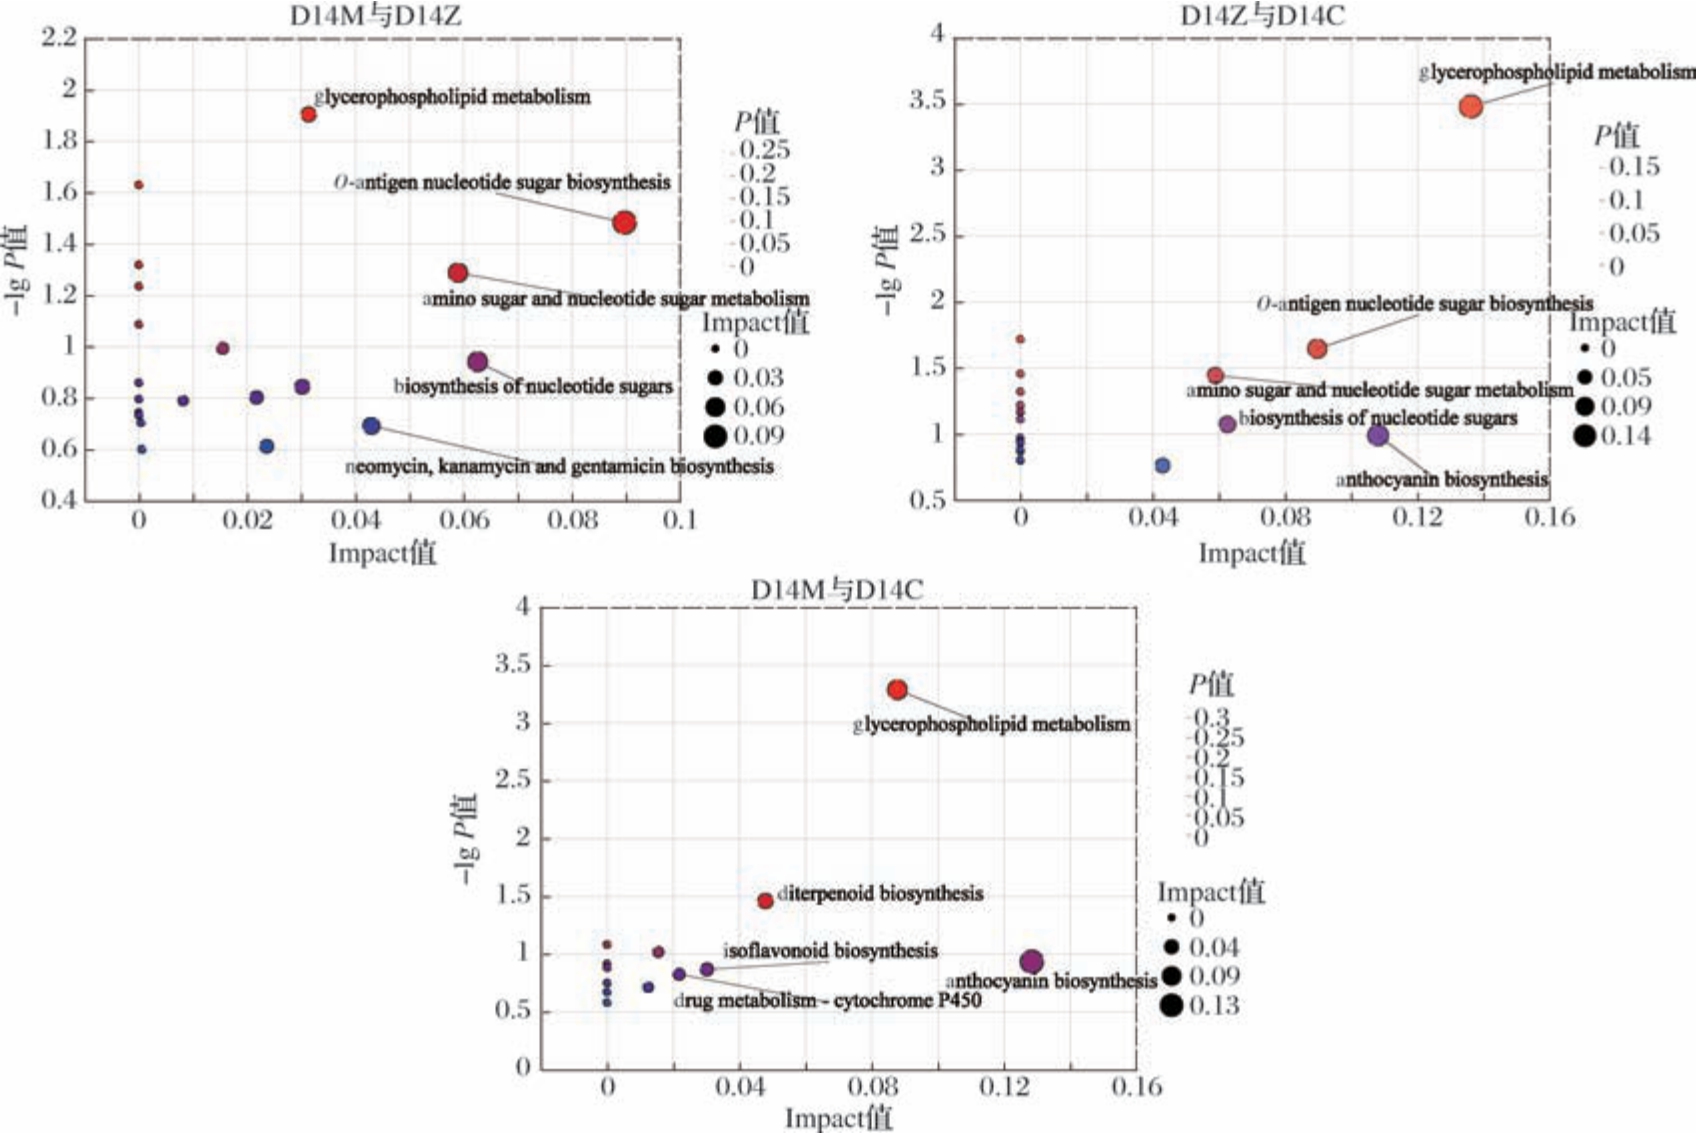
图9 第14 天不同发酵位置机械高温大曲差异代谢物KEGG 富集通路
Fig.9 KEGG enrichment of metabolic pathways in mechanical high-temperature Daqu at different fermentation positions on day 14
注:O-antigen nucleotide sugar biosynthesis:O-抗原核苷酸糖生物合成;biosynthesis of nucleotide sugars:核苷酸糖的生物合成;amino sugar and nucleotide sugar metabolism:氨基糖和核苷酸糖代谢;neomycin, kanamycin and gentamicin biosynthesis:新霉素、卡那霉素和庆大霉素的生物合成;glycerophospholipid metabolism:甘油磷脂代谢;anthocyanin biosynthesis:花青素生物合成;diterpenoid biosynthesis:二萜生物合成;isoflavonoid biosynthesis:异黄酮生物合成;drug metabolism-cytochrome P450:药物代谢-细胞色素P450。
3 结论与讨论
本研究基于非靶向代谢组学技术,系统解析了机械高温大曲在发酵过程中代谢物在时间(第0、7、14、40 天)与空间(靠门、靠中、靠窗)双维度上的动态变化规律。 时间尺度上,发酵进程呈现显著的阶段性代谢特征。 根据不同发酵时间间差异代谢物变化趋势可将整个发酵过程划分为0 ~7 d(前期)和7 ~40 d(后期)这2 个阶段,发酵前期代谢活跃,脂质及类脂分子、有机酸及其衍生物、有机杂环化合物等关键代谢物数目显著下调,而甘油磷脂代谢等通路显著富集,揭示了微生物在发酵初期对营养物质的大量消耗与转化。 发酵中后期,代谢物组成趋于稳定,黄酮与黄酮醇的生物合成等次级代谢通路开始富集,标志着代谢活动从基础能量代谢向风味与功能物质合成的转变。 空间尺度上曲房内不同发酵位置(靠门、靠中、靠窗)的通风与温湿度差异,直接导致了代谢物组成的空间分异。 具体表现为:靠中位置因温度较高、通风较差,更利于脂质及类脂分子的积累与高温菌属(如Thermoactinomyces)的代谢活动;而靠门与靠窗位置由于氧气相对充足,则促进了有机酸及其衍生物的生成。 这种空间异质性在发酵中期(第14 天)最为显著,表明该时期是微环境影响代谢、决定大曲品质分化的关键时间阶段。
研究筛选出了组氨酰脯氨酸酰胺、丙氨酰色氨酸、木二糖、谷氨酰赖氨酸、N-硬脂酰半胱氨酸等在不同时间或空间比较组中显著变化的代谢物。 这些代谢物作为氨基酸、脂质代谢等关键通路的中间体或产物,不仅关联着微生物的氮源利用、能量代谢等生理活动,更是吡嗪类、高级醇等白酒风味物质的重要前体,其动态变化从代谢层面直接印证了高温大曲发酵的时空异质性。
综上所述,本研究从代谢物层面揭示了机械高温大曲发酵过程中存在的显著时空异质性,并阐明了其与微环境因子的内在关联。 研究结果不仅深化了对高温大曲发酵机制的理解,也为通过调控发酵微环境(如优化曲房通风与翻曲工艺)来定向引导代谢流向、提升机械大曲品质的均一性与稳定性,提供了重要的理论依据和数据支撑。 然而,非靶向代谢组学方法在机制阐释上存在一定局限,尤其难以直接反映代谢流与关键酶活性的因果关联性。 未来研究可进一步结合稳定同位素示踪技术(如13 C 标记)开展靶向代谢流分析,同时,测定相关酶在发酵过程中的活性变化,并结合宏转录组或宏蛋白组数据,从“基因表达-酶活性-代谢物积累”多维度构建因果关联网络,从而更系统地揭示高温大曲发酵的代谢调控机制。
[1] Xia Y, Luo H B, Wu Z Y, et al. Microbial diversity in jiuqu and its fermentation features:saccharification, alcohol fermentation and flavors generation[J]. Applied Microbiology and Biotechnology,2023, 107(1):25 -41.
[2] Huang Y, Li D, Mu Y, et al. Exploring the heterogeneity of community and function and correspondence of “species-enzymes” among three types of Daqu with different fermentation peak-temperature via high-throughput sequencing and metagenomics[J]. Food Research International, 2024, 176:113805.
[3] Wei Y H, Wen Z, Yao S J, et al. Tempo-spatial dynamics of physicochemical properties and microbial communities in high-temperature Daqu during the fermentation process[J]. Food Chemistry:X,2025, 29:102815.
[4] 刘俊男, 杨阳, 魏阳, 等. 曲房内空间位置对高温大曲发酵过程中细菌群落动态变化的影响[J]. 食品与发酵工业, 2025, 51(24):276 -283.Liu J N, Yang Y, Wei Y, et al. Effect of spatial locations in Qu room on bacterial community dynamics during high-temperature Daqu fermentation[J]. Food and Fermentation Industries, 2025,51(24):276 -283.
[5] Yang L, Fan W L, Xu Y. Qu-omics elucidates the formation and spatio-temporal differentiation mechanism underlying the microecology of high temperature Daqu[J]. Food Chemistry, 2024, 438:137988.
[6] Wang L C, Shen Y, Chen B, et al. Spatial environments of stack and layer shape the quality of Chinese sauce aroma Daqu:characteristics, functions, and relationships[J]. International Journal of Food Microbiology, 2025, 440:111287.
[7] Li Y H, Yang X, Zhang Q M, et al. Dynamics of physicochemical properties, volatile aroma compounds and non-volatile metabolites of Zhaiji millet vinegar during aging:A systematic elucidation by GCIMS coupled with UPLC-MS/MS untargeted metabolomics[J]. Food Chemistry, 2025, 493:146009.
[8] Shi G L, Fang C, Xing S, et al. Heterogenetic mechanism in hightemperature Daqu fermentation by traditional craft and mechanical craft:From microbial assembly patterns to metabolism phenotypes[J]. Food Research International, 2024, 187:114327.
[9] Zhu Q, Chen L Q, Pu X X, et al. The differences in the composition of Maillard components between three kinds of sauce-flavor daqu[J]. Fermentation, 2023, 9(9):860.
[10] Trinh T T T, Woon W Y, Yu B, et al. Effect of L-isoleucine and L-phenylalanine addition on aroma compound formation during Longan juice fermentation by a co-culture of Saccharomyces cerevisiae and Williopsis saturnus[J]. South African Journal of Enology and Viticulture, 2016, 31(2):116 -124.
[11] Liu C, Xu Y M, Kirk R D, et al. Inhibitory effects of skin permeable glucitol-core containing gallotannins from red maple leaves on elastase and their protective effects on human keratinocytes[J].Journal of Functional Foods, 2020, 75:104208.
[12] Yan N, Du Y M, Liu X M, et al. A comparative UHPLC-QqQMS-based metabolomics approach for evaluating Chinese and North American wild rice[J]. Food Chemistry, 2019, 275:618 -627.
[13] Tang Q X, Chen X R, Huang J, et al. Mechanism of enhancing pyrazines in Daqu via inoculating Bacillus licheniformis with strains specificity[J]. Foods, 2023, 12(2):304.
[14] 张巧玲, 吕锡斌, 秦兴, 等. 酱香型白酒高温大曲游离氨基酸比较分析[J]. 中国酿造, 2019, 38(4):53 -57.Zhang Q L, Lyu X B, Qin X, et al. Comparative analysis of free amino acids in high temperature Daqu of Moutai-flavor Baijiu[J].China Brewing, 2019, 38(4):53 -57.
[15] González B, Vázquez J, Cullen P J, et al. Aromatic amino acidderived compounds induce morphological changes and modulate the cell growth of wine yeast species[J]. Frontiers in Microbiology,2018, 9:670.
[16] Dong M, Zhou Z, Wang B, et al. Investigating the quality discrepancy between different salmon and tracing the key lipid precursors of roasted flavor[J]. Food Chemistry, 2025, 463:141452.
[17] 邓阿玲, 唐杰, 朱楚天, 等. 黑色高温大曲在固态发酵过程中的微生物群落及风味化合物演替驱动机制[J]. 食品科学,2024, 45(23):102 -112.Deng A L, Tang J, Zhu C T, et al. Driving mechanisms for microbial community succession and change of volatile flavor compounds during the solid-state fermentation of black high-temperature daqu[J]. Food Science, 2024, 45(23):102 -112.
[18] 杨文博, 彭丹, 曹思邈, 等. 微生物合成黄酮类化合物研究进展[J]. 生命科学, 2022, 34(2):220 -227.Yang W B, Peng D, Cao S M, et al. Research progress on microbial synthesis of flavonoids[J]. Chinese Bulletin of Life Sciences,2022, 34(2):220 -227.
[19] Deng L, Mao X, Liu D, et al. Comparative analysis of physicochemical properties and microbial composition in high-temperature Daqu with different colors[J]. Frontiers in Microbiology, 2020,11:588117.
[20] Chen Z X, Wu Q, Wang L, et al. Identification and quantification of surfactin, a nonvolatile lipopeptide in Moutai liquor[J]. International Journal of Food Properties, 2020, 23(1):189 -198.
[21] He G Q, Dong Y, Huang J, et al. Alteration of microbial community for improving flavor character of Daqu by inoculation with Bacillus velezensis and Bacillus subtilis[J]. LWT, 2019, 111:1 -8.
[22] Li N, Fu J J, Zhang G R, et al. Investigating the mechanism of the flavor formation in Sichuan Sun vinegar based on flavor-orientation and metagenomics[J]. Current Research in Food Science,2023, 6:100460.
[23] 冯慧军, 翟磊, 于学健, 等. 大曲高温放线菌CICC 10681 在不同温度下的脂肪酸代谢变化[J]. 食品与发酵工业, 2018, 44(11):49 -54.Feng H J, Zhai L, Yu X J, et al. Fatty acids metabolism changes of Thermoactinomyces daqus CICC 10681 at different temperatures[J]. Food and Fermentation Industries, 2018, 44(11):49 -54.
[24] 陆力华. 两种香型白酒中甜味物质的初步研究[D]. 贵阳:贵州大学, 2022.LU L H. Preliminary study on sweeteners in two kinds of Baijiu[D]. Guizhou:University of Guizhou, 2022.
[25] Wei J L, Lu J, Nie Y, et al. Amino acids drive the deterministic assembly process of fungal community and affect the flavor metabolites in Baijiu fermentation[J]. Microbiology Spectrum, 2023, 11(2):e0264022.
[26] Takagi H. Metabolic regulatory mechanisms and physiological roles of functional amino acids and their applications in yeast[J]. Bioscience, Biotechnology, and Biochemistry, 2019, 83(8):1449 -1462.
[27] Yang L, Fan W L, Xu Y. Effects of storage period and season on the microecological characteristics of Jiangxiangxing high-temperature Daqu[J]. Food Research International, 2024, 196:115034.
[28] Zhang Y L, Xu C, Xing G, et al. Evaluation of microbial communities of Chinese Feng-flavor Daqu with effects of environmental factors using traceability analysis[J]. Scientific Reports, 2023,13:7657.
[29] 王嘉丽, 杨阳, 何卓, 等. 酱香型大曲功能微生物鉴定、强化策略及应用研究进展[J]. 食品与发酵工业, 2026, 52(4):430 -440.Wang J L, Yang Y, He Z, et al. Research progress on identification, strengthening strategies and application of functional microorganisms in sauce-flavor Daqu[J]. Food and Fermentation Industries, 2026, 52(4):430 -440.
[30] Wu M Y, Luo Y, Yao Y Q, et al. Multidimensional analysis of wheat original crucial endogenous enzymes driving microbial communities metabolism during high-temperature Daqu fermentation[J]. International Journal of Food Microbiology, 2024, 413:110589.
[31] 冯敏雪, 甘霖耀, 赵晴, 等. 浓香型白酒酿造过程中萜类化合物及溯源分析[J]. 食品科学, 2023, 44(6):254 -261.Feng M X, Gan L Y, Zhao Q, et al. Detection and source analysis of terpenoids in nongxiangxing Baijiu during the brewing process[J]. Food Science, 2023, 44(6):254 -261.