墨红玫瑰为蔷薇科(Rosaceae)蔷薇属(Rosa)灌木植物的干燥花瓣,是兼具观赏、食用与药用价值的特色玫瑰品种,在云南、山东、江苏等地广泛种植[1-3]。 中医理论认为其性温味甘、微苦,归肝、脾经,具有理气解郁、活血散瘀之功效,常用于肝郁气滞、脘腹胀痛、瘀血阻滞等症[4-5]。 现代研究表明,墨红玫瑰富含挥发油、黄酮类、多酚类等活性成分,且含有香茅醇、苯乙醇、香叶醇、玫瑰醚等多种特征香味物质[6-10],这些香气物质赋予了墨红玫瑰浓郁醇厚的典型玫瑰香型风味,使其成为天然花香香料开发的优质原料。 玫瑰香型香气成分作为决定玫瑰香料品质的核心指标,其生成与积累的过程受内生微生物群落的代谢活动调控,明确内生菌群落结构及其与香气成分的关联机制,对定向提升玫瑰香料品质具有重要意义。
目前,关于玫瑰香气物质的研究多集中于提取工艺优化与成分鉴定,而针对玫瑰内生菌种的群落多样性及其对香气合成调控作用的系统性研究较为匮乏。已有研究证实,植物内生真菌可通过次级代谢参与芳香醇、酯类等香气物质的合成或转化[11-13],但其在玫瑰发酵过程中的群落演替规律、核心功能类群及其与特征香气成分的相关性尚未明确。 此外,发酵过程中不同真菌类群的协同或拮抗作用如何影响香气轮廓形成,关键功能菌种的筛选与应用潜力也有待进一步挖掘;由于墨红玫瑰也属于可食用类植物,故其内生真菌的筛选参照目前食品行业的食用菌菌种检验规程进行实验操作。
本研究以墨红玫瑰为实验材料,采用高通量测序技术解析发酵过程中内生真菌群落的多样性与演替特征,通过顶空固相微萃取联合气相色谱质谱(solidphase microextraction combined with gas chromatography-mass spectrometry,SPME-GC-MS)技术分析挥发性香气成分的动态变化,结合Spearman 相关性分析揭示核心真菌类群与特征香气物质的关联规律,并通过菌种发酵验证明确功能菌株的应用价值。 研究结果可为玫瑰香型天然香料的品质调控提供理论依据,同时为墨红玫瑰发酵功能菌种的筛选提供方法。
1 材料与方法
1.1 材料与试剂
墨红玫瑰花瓣,郑州市金水区花卉市场;氯化钠(AR),天津市富宇精细化工有限公司;PDA 培养基,北京奥博星生物技术有限责任公司。
1.2 仪器与设备
LS-35HD 高压灭菌锅,江阴滨江医疗设备有限公司;SW-CJ-1D 无菌工作台,苏州净化首设备有限公司;UV-5500 紫外分光光度计,上海元析仪器有限公司;LHS-150 智能恒温恒湿培养箱,郑州生元仪器有限公司;FA-1004 电子分析天平,宁波市鄞州华丰仪器厂;SH-3C 数显恒温磁力搅拌加热台,天津市泰斯特仪器有限公司;64055-U 型SPME 萃取头,北京康林科技有限责任公司;GCMS-QP2010 气质联用仪,日本岛津公司。
1.3 实验方法
1.3.1 墨红玫瑰内源性真菌菌群富集和发酵
菌群富集:富集内生菌群的过程参照解雨佳等[11]在草莓中筛选其内生菌群的方法,称取1.00 g墨红玫瑰花瓣,剪碎,于无菌条件下加入到9 mL 无菌水中,在27 ℃、200 r/min 条件下均匀摇动20 min,取其上清液2 mL,加入PDA 培养基中,在恒温培养箱中于30 ℃培养48 h 后完成富集。
玫瑰发酵:将富集后的菌液通过紫外分光光度计精准测定菌液在600 nm 波长下的吸光度(OD600nm值),随后将菌液稀释至OD600nm值为0.7,并按照墨红玫瑰原料质量的10% 接入稀释后的菌液发酵32 h,随后每间隔8 h 取1 次样进行下一步的实验。
1.3.2 墨红玫瑰内源性菌种发酵后挥发性成分SPME-GC-MS 分析
SPME 富集挥发性成分:分别称取2 g 发酵0、8、16、24、32 h 的墨红玫瑰样品放入顶空萃取瓶中,加入2 mL 饱和食盐水后将瓶口密闭,插入萃取针并将萃取瓶放置水浴锅中,设置温度为45 ℃萃取。 将120 μm 萃取头置于气相色谱仪进样口,在250 ℃下老化5 min,设置平衡温度为50 ℃,平衡5 min 后插入顶空瓶中萃取20 min,再老化5 min。
GC-MS 分析墨红玫瑰挥发性成分[14-15]:色谱柱为HP-5 MS 弹性石英毛细管柱(30 m × 0. 25 mm,0.25 μm);程序升温:初始温度50 ℃,以10 ℃/min升至100 ℃,保持1 min;以20 ℃/min 升至140 ℃,保持1 min;以5 ℃/min 升至165 ℃,保持1 min;以20 ℃/min 升至250 ℃,保持1 min;进样口温度为220 ℃;载气为高纯度氦气(纯度>99.999%);柱前压为9.8 psi;柱流量为1.0 mL/min;分流进样,分流比为5∶1。
电离方式:离子源EI 源,温度230 ℃,电子能量70 eV;四级杆温度150 ℃;倍增管电压1.2 kV;接口温度230 ℃;质荷比范围40 ~450 m/z。
挥发性成分定性定量分析方法:定性方法,质谱库(80%以上的相似度)和保留时间;定量方法,峰面积归一化方法。
1.3.3 墨红玫瑰原料及发酵物感官剖面分析
感官评价小组的组建:按照GB/T 14454. 2—2008《香料香气评定法》挑选5 人组成感官人员,身体健康,无感官功能的缺陷或缺失,对香气有正常的敏感性,对需要评价的样品无过敏性。
感官人员训练:邀请调香师对小组成员进行嗅香评价培训,使小组成员能掌握正确的嗅香评价方法,统一和规范小组成员的香气描述术语。 选用20 种常用香料分别配制成一系列含量梯度的乙醇溶液,采用三点选配法对小组成员进行每天1 次的嗅香评价训练,使小组成员有较为稳定和准确的嗅香评价能力。
选取新鲜墨红玫瑰及其发酵物,在无异味、通风良好的感官评价室中,由5 名经训练的评价员(需熟悉玫瑰香气特征、统一描述词汇及评分尺度)独立嗅闻,识别并记录所有香气特征(花香、玫瑰香、木香、果香、柑橘香、草香)和舒适度及协调性,采用9 分制(1 表示极弱,9 表示极强)对各特征强度及整体协调性打分,收集数据后计算平均值并通过Origin2024 绘制感官剖面图,以量化呈现玫瑰原料的香气特征及强度分布。
1.3.4 高通量测序
使用DNeasy® PowerSoil® Pro Kit 将内生菌群发酵0、8、16、24、32 h 的墨红玫瑰样品进行DNA 提取,经过分光光度计和电泳检测合格后,使用barcode 标记引物进行PCR 扩增。 内生真菌ITS 的PCR 扩增使用的引物为ITS1F(5′-CTTGGTCATTTAGAGGAAGTAA-3′) 和 ITS2R (5′-GCTGCGTTCTTCATCGATGC-3′),由上海美吉生物医药科技有限公司提供专业技术支持。
1.4 数据分析
本研究采用上海美吉生物科技Majorbio Cloud 平台进行微生物组学数据分析。 主成分分析(principal component analysis,PCA)和相关性分析由R 3.3.1 完成,群落组成堆叠柱状图和韦恩图由python 2.7.10 完成。
2 结果与分析
2.1 墨红玫瑰真菌群落多样性分析
2.1.1 不同发酵时间真菌群落α 多样性分析
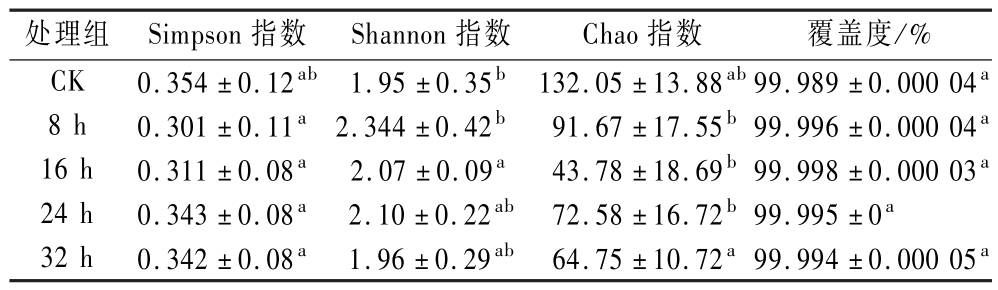
由表1 所示,各时间节点处理组及对照组(CK)的覆盖度均达到99.98%以上,其中16 h 处理组最高达99.998%,且各组间无显著差异。
表1 墨红玫瑰真菌α 多样性分析
Table 1 α diversity analysis of Rosa rugosa Thunb.
处理组 Simpson 指数Shannon 指数Chao 指数覆盖度/%CK0.354 ±0.12ab 1.95 ±0.35b 132.05 ±13.88ab 99.989 ±0.000 04a 8 h0.301 ±0.11a 2.344 ±0.42b 91.67 ±17.55b 99.996 ±0.000 04a 16 h0.311 ±0.08a2.07 ±0.09a43.78 ±18.69b 99.998 ±0.000 03a 24 h0.343 ±0.08a 2.10 ±0.22ab 72.58 ±16.72b 99.995 ±0a 32 h0.342 ±0.08a 1.96 ±0.29ab 64.75 ±10.72a 99.994 ±0.000 05a
注:不同小写字母表示差异显著(P <0.05)(下同)。
在群落均匀度方面(Simpson 指数),CK 组为0.354,8 h 处理组降至0.301,较CK 组下降15.0%,表明发酵初期真菌群落为适应新环境,部分原有微生物难以存活,导致群落均匀度显著降低;随着发酵进程推进,16、24、32 h 处理组Simpson 指数逐步回升,其中24 h 处理组已接近CK 组水平,说明内源与环境微生物逐步增殖,群落均匀度得到有效恢复。
在群落多样性方面(Shannon 指数),8 h 处理组达到峰值,显著高于16 h 处理组,其余各组无显著差异;在群落丰度层面(Chao 指数),CK 组丰度最高,16 h处理组降至最低,随后24、32 h 处理组逐步回升,其中24 h 处理组较16 h 处理组提升65.8%,群落丰度恢复效果较好。
综上,24 h 处理组在Simpson 指数、Shannon 指数和Chao 指数上均表现均衡,既保持了较高的群落均匀度和多样性,又实现了丰度的有效恢复,且各项指标稳定性良好;32 h 处理组表现与24 h 处理组相近,但群落丰度较低。 玫瑰发酵初期(0 ~16 h),真菌群落为适应发酵环境发生明显交替演变,原有优势微生物减少,导致群落丰度显著下降;进入发酵中后期(16 ~24 h),适应性强的新优势微生物逐步增殖,群落结构逐步优化并趋于稳定,其中24 h 是墨红玫瑰内生真菌群落结构与多样性协调优化的最优发酵时间节点。
2.1.2 墨红玫瑰内生真菌群落组成Venn 图
由图1 所示,墨红玫瑰真菌群落操作分类单元(operational taxonomic unit,OTU)数从大到小依次为0 h >8 h >24 h >32 h >16 h,其中发酵0 h 组的内生菌群落OTU 数达264,发酵16 h 组仅为85,在发酵过程中墨红玫瑰内生真菌群落OTU 数目显著降低;而发酵24 h 和32 h 组能够有效维持墨红玫瑰内生真菌群落OTU 数目,其中发酵24 h 组的OTU 数目多于32 h,相较发酵16 h 组提升了69.41%,相比于发酵8 h组虽有降低但仍保持较高水平。 所有的发酵时间节点共有内生真菌群落OTU 总数为37,发酵0 h 组特有的内生真菌OTU 个数为127(占比27.14%),发酵8 h 组特有的内生真菌OTU 个数为79(占比16.88%),发酵24 h 和32 h 组特有的内生真菌OTU 个数分别为43(占比9.19%)和42(占比8.97%)。
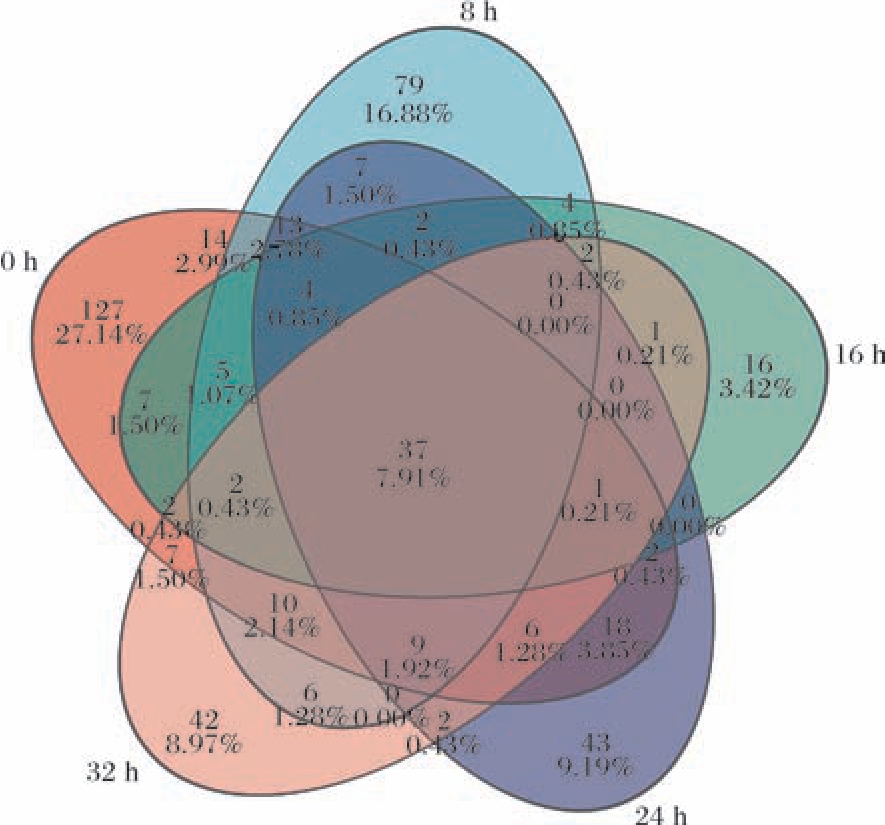
图1 墨红玫瑰内生真菌群落Venn 分析
Fig.1 Venn analysis of endophytic fungal community in Rosa rugosa Thunb.
2.1.3 对门水平和属水平的墨红玫瑰内生真菌群落组成分析
如图2 所示,门水平所有发酵时间节点(0、8、16、24、32 h)的墨红玫瑰内生真菌的主要优势门类为Ascomycota 和Basidiomycota,其中Ascomycota 的相对丰度均超过80%,占据绝对优势;Basidiomycota 的相对丰度也维持在较高水平,两者合计相对丰度占墨红玫瑰内生真菌总序列的95% 以上,共同构成了墨红玫瑰内生真菌群落的主要类群。 从具体的群落丰度变化来看,Ascomycota 在各发酵时间节点中的相对丰度表现为0 h≈32 h >8 h≈16 h≈24 h,其保持了整体稳定且高丰度的特征,Basidiomycota 的相对丰度在各发酵时间节点中差异较小。
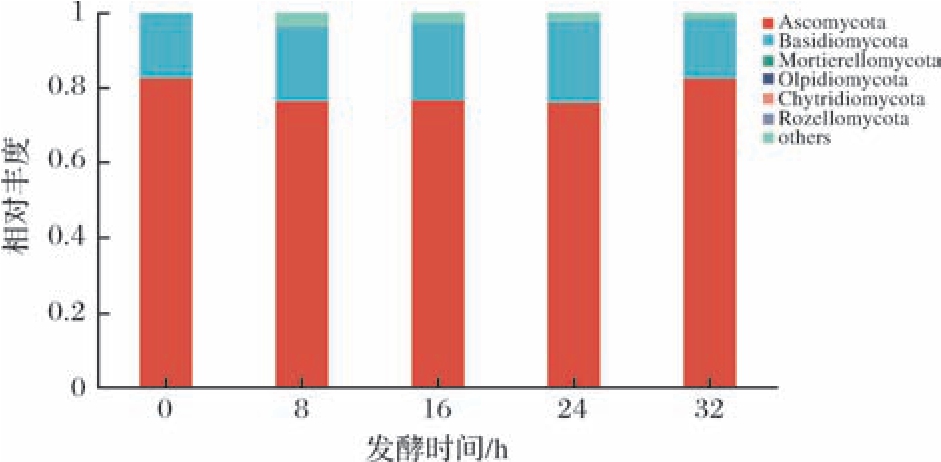
图2 真菌群落在门水平上的相对丰度
Fig.2 Relative abundance of fungal community at phylum level
注:Ascomycota:子囊菌门;Basidiomycota:担子菌门;Chytridiomycota:壶菌门;Olpidiomycota:油壶菌门;Mortierellomycota:被孢霉门;Rozellomycota:罗兹菌门;others:其他类群。
如图3 所示,属水平所有发酵时间节点(0 h、8 h、16 h、24 h、32 h)的墨红玫瑰内生真菌主要优势属类为Saccharomyces 属,其相对丰度在各发酵时间节点中均超过50%,占据绝对主导地位;同时还包含Sporobolomyces(约5% ~10%)、Rhodotorula(约3% ~8%)等多个属类及未明确属级分类的真菌类群(约20% ~30%),这些优势属类的平均相对丰度占总序列的80%以上,共同构成了玫瑰真菌群落的核心属级群落。
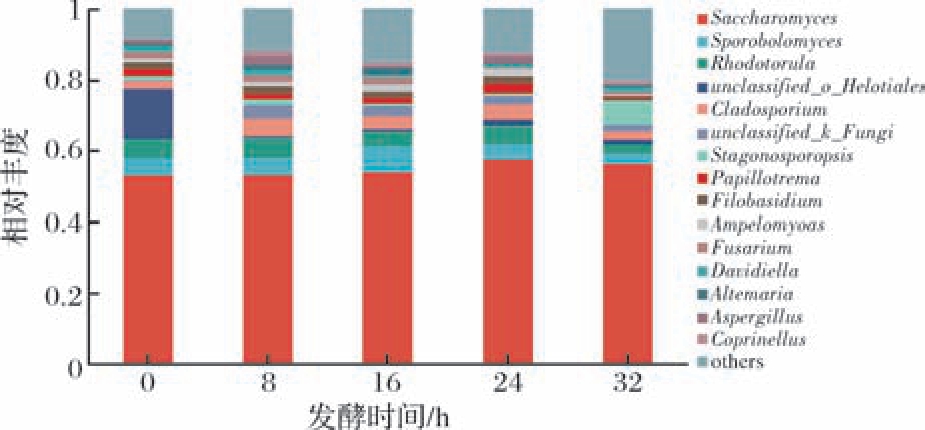
图3 真菌群落在属水平上的相对丰度
Fig.3 Relative abundance of fungal community at genus level
注:Saccharomyces:酵母菌属;Sporobolomyces:掷孢酵母属;Rhodotorula:红酵母属;unclassified_o__Helotiales 未分类柔膜菌目;Cladosporium:枝孢霉属;unclassified_k__Fungi 未分类真菌;Stagonosporopsis 壳多孢属;Papiliotrema:毕赤酵母属;Filobasidium:丝孢酵母属;Ampelomyces:白粉寄生孢属;Fusarium:镰刀菌属;Davidiella:戴维霉属;Alternaria 链格孢属;Aspergillus:曲霉属;Coprinellus:小环柄菇属。
从具体优势属的丰度变化来看,Saccharomyces 属在0、8、16、24、32 h 的发酵时间节点中的相对丰度均稳定在 50% 以上, 其他属类如 Sporobolomyces、Rhodotorula 等在各处理间的相对丰度差异较小。 玫瑰真菌群落在发酵过程中(0 h ~32 h),核心优势菌属的组成和丰度未发生显著波动,Saccharomyces 属始终占据主导,其他多个属类并存,这为墨红玫瑰内生真菌群落功能的发挥提供了稳定的种群基础。
2.1.4 墨红玫瑰发酵过程中菌种组成的β 多样性分析
图4 基于OTU 水平解析了玫瑰内生菌群在发酵0 ~32 h 内的群落结构分异特征。 PC1(17.6%贡献率)和PC2(11.62% 贡献率)共影响约29.22% 的群落变异,其中PC1 是驱动群落分异的核心维度。 从空间分布看,发酵0 h 的样本在PC1 负向区域形成独立聚类,与其他时间点群落结构差异显著。 发酵8 h、16 h、24 h 的样本在PC1 中正向区域呈聚类分布,说明这3 个发酵时间节点菌群结构具有较高相似性,处于代谢活动活跃的动态过渡阶段;发酵32 h 的样本在PC1 正向区域单独聚类,表明此时群落结构已趋于稳定。 结合PC1 和PC2 的箱线图可见,发酵0 h 的样本在PC1 上的分布区间与其他组完全分离,发酵32 h 的样本分布区间最广,发酵8 h 的样本在PC2 上的中位数与后期时间点存在明显差异。
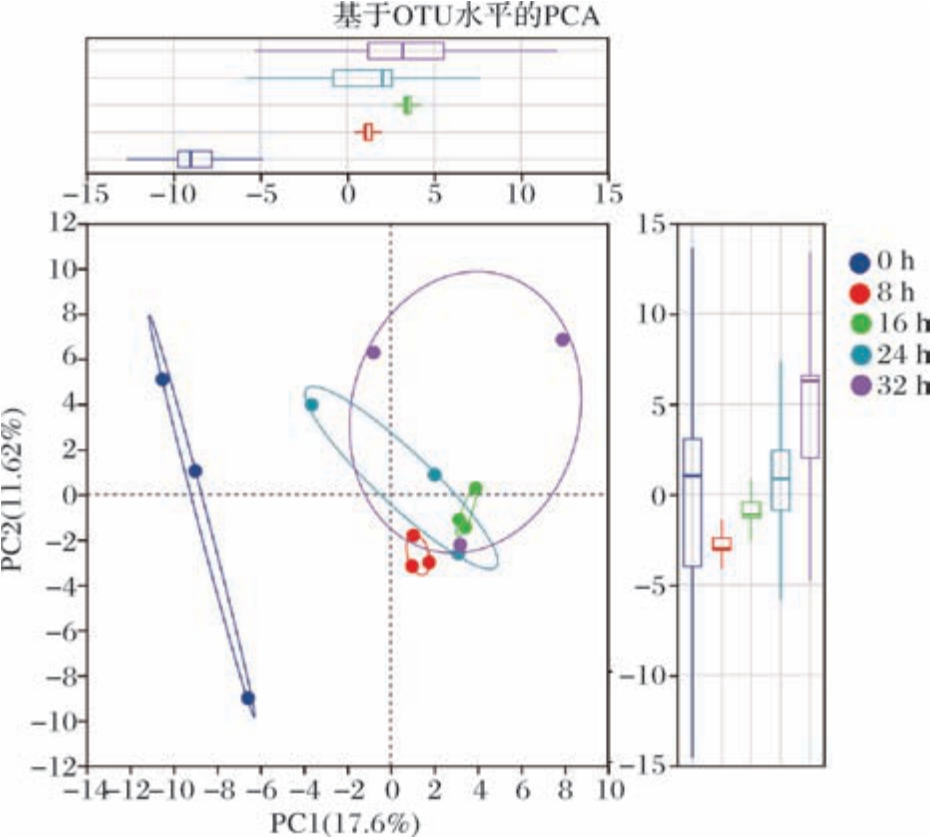
图4 墨红玫瑰内生菌发酵过程中菌种组成的PCA
Fig.4 PCA of strain composition in the fermentation process of endophytic bacteria in Rosa rugosa Thunb.
图5为基于OTU 水平的玫瑰内生菌群发酵0 ~32 h 的非度量多维尺度分析(non-metric multidimensional scaling,NMDS)结果,应力值0.078( <0.2),表明分析结果可靠。 NMDS1 和NMDS2 维度中,发酵0 h 的样本(蓝色)在NMDS1 负向区域独立聚类,发酵8 h 的样本(红色)分布相对分散,处于代谢活动启动的过渡阶段;发酵16、24 h 的样本(绿色、蓝色)聚类集中,发酵32 h 的样本(紫色)单独成簇。 NMDS1维度中发酵0 h 的样本分布区间与其他组完全分离,发酵32 h 的样本分布最广;NMDS2 维度中发酵8 h的样本分布的跨度较大,与后期阶段存在差异。 发酵时间是驱动真菌菌群结构变化的核心因素,群落结构呈现“0 h 初始态→8 h 过渡启动期→16 ~24 h 动态稳定期→32 h 稳定态”的阶段性演替规律,这种差异与墨红玫瑰发酵香气物质积累与发酵时间密切相关。
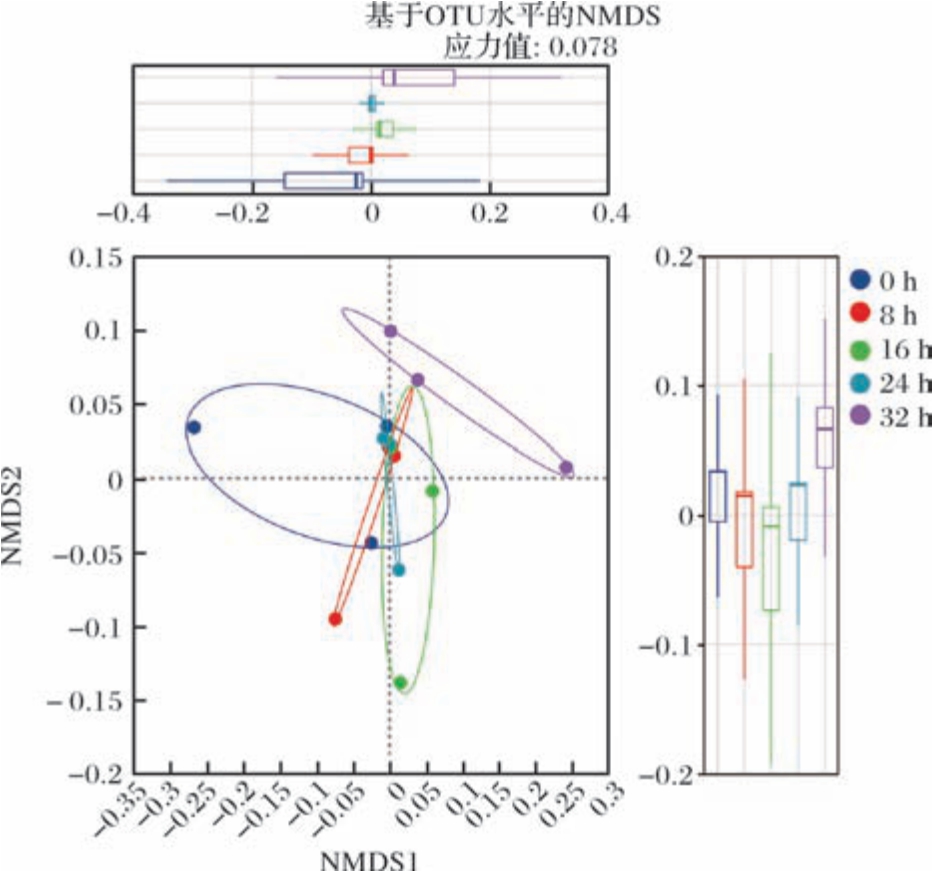
图5 墨红玫瑰内生菌发酵过程中菌种组成的NMDS 分析
Fig.5 NMDS analysis of strain composition during fermentation of endophytic bacteria in Rosa rugosa Thunb.
2.2 墨红玫瑰发酵过程中菌种多样性与核心香气成分含量变化的相关性分析
如表2 和图6 所示,墨红玫瑰经内生真菌发酵24 h 后,6 种玫瑰特征香味成分的相对含量均有不同程度的提升,表明其香气质量在菌群发酵后有较为明显的改善,其中柠檬醛的相对含量增幅最大,达306.3%,玫瑰醚次之,增幅为293. 1%,芳樟醇相对含量的增幅为111.5%,香叶醇相对含量的增幅达到了52.0%,香茅醇相对含量增幅为41.0%,苯乙醇相对含量的增幅为30.6%。
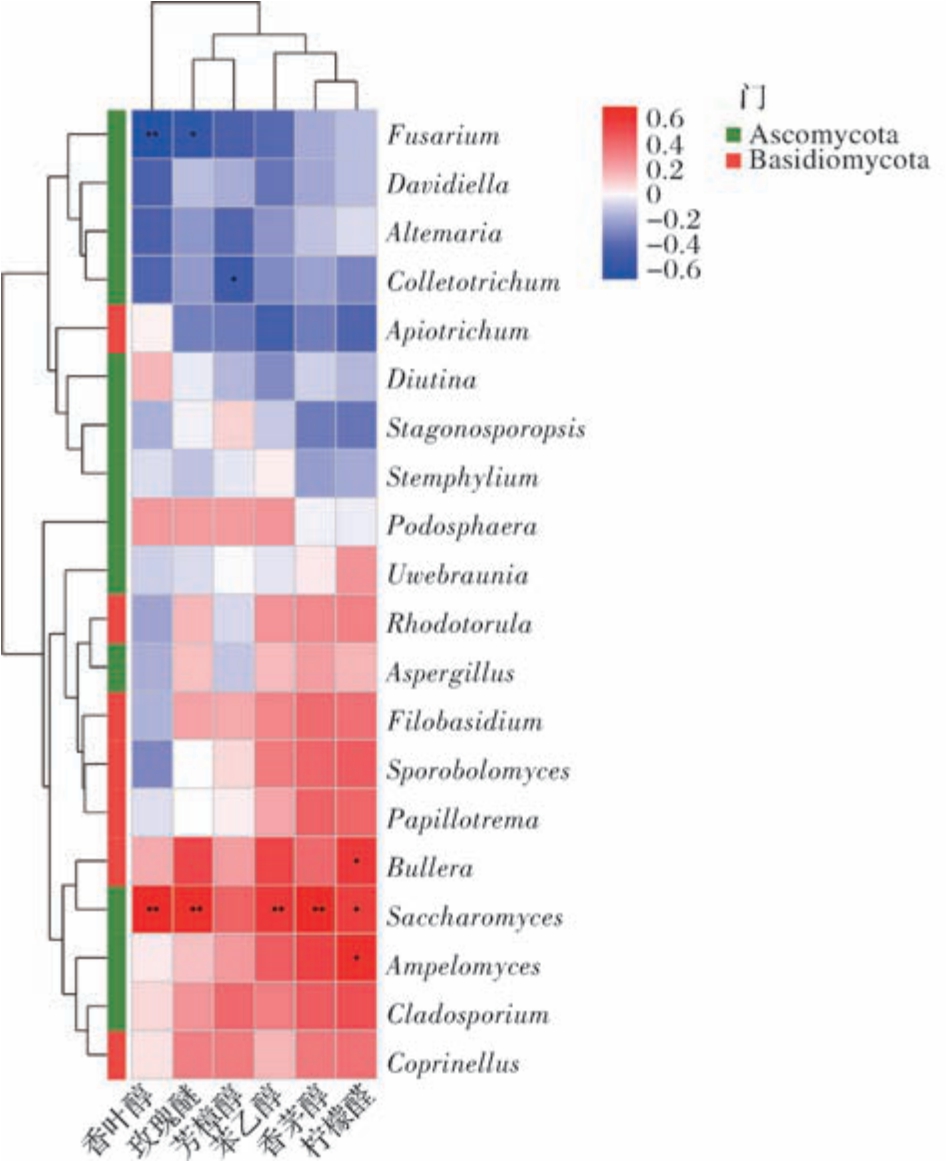
图6 墨红玫瑰发酵过程中菌种与香气物质的相关性热图Fig.6 Correlation heatmap between strains and aroma substances during the fermentation of Rosa rugosa Thunb.
注:Colletotrichum:炭疽菌属;Apiosporina:梨黑星菌属;Diutina:迪蒂纳酵母属;Stemphylium:壳隔孢属;Podosphaera:叉丝单囊壳属;Uwebraunia:乌布酵母属;Sporobolomyces:掷孢酵母属;Papiliotrema:蝶形担酵母属;Bullera:布勒酵母属。 图中*表示差异显著(P <0.05),**表示差异极显著(P <0.01)。
表2 墨红玫瑰内生真菌发酵0 ~36 h 后核心香气成分相对含量SPME-GC-MS 结果
Table 2 SPME-GC-MS results of the relative contents of core aroma components after 0 -36 h of fermentation by endophytic fungi from Rosa rugosa Thunb.

样品名称苯乙醇相对含量/%苯乙醇峰面积( ×106)香茅醇相对含量/%香茅醇峰面积( ×106)香叶醇相对含量/%香叶醇峰面积( ×106)玫瑰醚相对含量/%玫瑰醚峰面积( ×106)芳樟醇相对含量/%芳樟醇峰面积( ×106)柠檬醛相对含量/%柠檬醛峰面积( ×106)0 h-111.16921.2123.131 909.281.96161.790.216.510.1915.680.1714.03 0 h-211.96987.2524.792 047.311.92158.490.541.270.2621.460.2117.33 0 h-311.54952.5823.971 978.622.01165.920.1613.210.3226.420.119.08 8 h-112.561 036.7728.322 337.791.96161.790.3932.190.4537.150.3629.72 8 h-212.781 054.9330.432 512.871.92158.490.5948.690.3427.970.4234.67 8 h-312.231 010.5328.72 369.062.01165.920.3831.370.3730.540.3730.54 16 h-113.31 107.8632.32 666.232.15177.470.5646.230.5847.880.6251.18 16 h-213.471 112.9929.942 471.432.13175.820.6755.310.433.020.5847.88 16 h-312.91 064.8431.932 635.692.18179.950.4738.800.4133.840.6351.99 24 h-115.561 284.4135.62 938.633.14259.191.41116.390.6553.660.7360.26 24 h-214.861 226.6333.322 750.422.98245.991.0284.200.5142.100.6553.66 24 h-314.821 222.3332.332 668.702.81231.95182.550.4839.620.5747.05 32 h-113.131 084.8325.052 067.772.53208.840.6150.350.4436.320.1915.68 32 h-212.351 020.4426.092 153.622.51207.190.7461.080.4637.970.2823.11 32 h-311.92983.9526.892 219.652.46203.060.5142.100.3528.890.2319.09
为探明墨红玫瑰发酵过程中香气物质的合成与积累与不同属类真菌群落的关系,选取了属一级较高丰度的的内生真菌与墨红玫瑰核心香味成分开展Spearman 相关性分析。 Saccharomyces(酵母属)与香叶醇、玫瑰醚、苯乙醇、香茅醇的代谢生成呈极显著正相关性;Bullera、Ampelomyces 菌种与柠檬醛的代谢生成呈显著正相关性。 Fusarium 菌种与香叶醇的代谢生成呈极显著负相关性,与玫瑰醚的代谢生成呈显著负相关性;Colletotrichum 菌种与芳樟醇的代谢生成呈显著负相关性。 相关性分析的结果表明Saccharomyces 菌群和墨红玫瑰特征香气物质的合成与积累有密切联系,故选定其为发酵墨红玫瑰增香的内源菌属。
2.3 Saccharomyces 的菌种鉴定结果
如图7 所示,将墨红玫瑰内生真菌Saccharomyces经分离纯化后接种至PDA 培养基中,30 ℃恒温培养48 h 后观察,该菌株菌落呈圆形,表面光滑湿润、质地黏稠,颜色为乳白色至米黄色,边缘整齐且无褶皱,菌落隆起度适中,挑起时可见黏液状拉丝现象,培养后期菌落颜色无明显加深,整体形态均一稳定,该菌落形态与周德庆[16]在微生物菌落形态鉴定中记载的酵母菌标准菌落特征一致,无杂菌菌落的不规则形态或色素分泌现象,表明菌株分离纯化效果良好。如图8 所示,该菌株细胞呈椭圆形,细胞大小均一,排列较为分散,部分细胞可见出芽生殖现象,芽体与母细胞连接紧密,形成短链状或单个芽体结构,未观察到菌丝、孢子囊或假菌丝形态。 这一显微特征符合酵母菌的典型细胞形态特征。 同时,该显微特征与Fusarium 的丝状形态、Cladosporium 的分枝菌丝形态存在显著差异,进一步排除了优势杂菌的干扰。
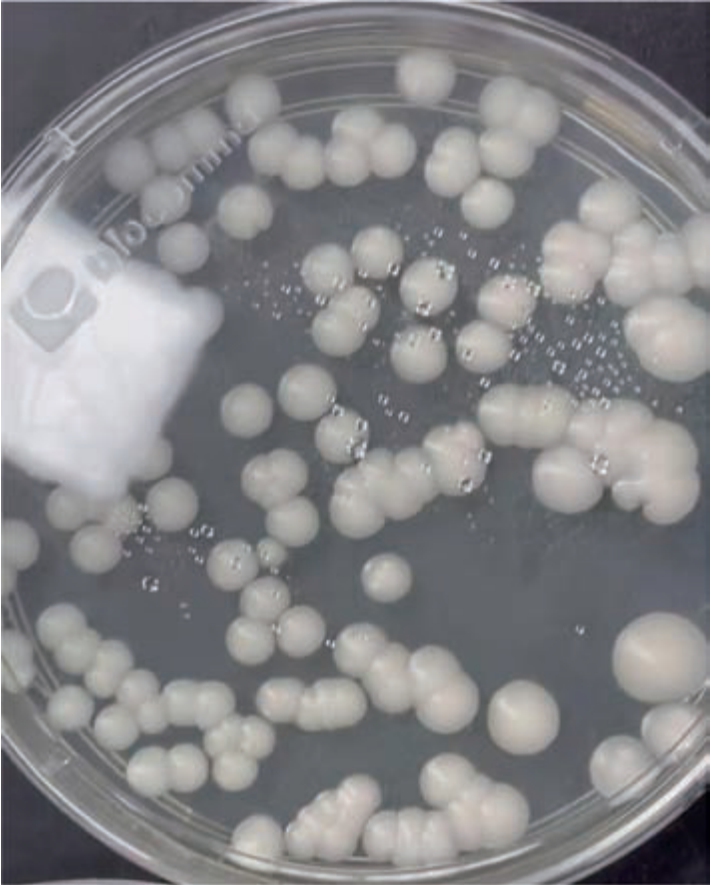
图7 墨红玫瑰内生菌Saccharomyces 在固体培养基的形态
Fig.7 Morphology of endophytic bacteria Saccharomyces in solid culture medium of Rosa rugosa Thunb.
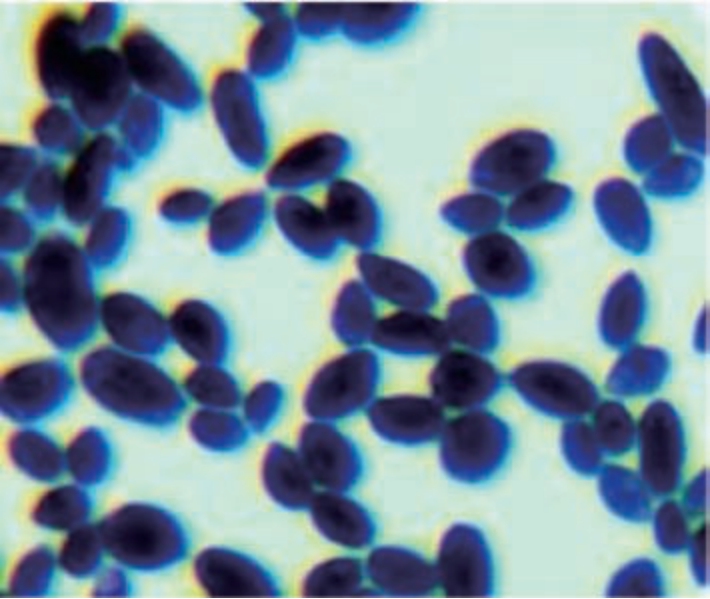
图8 墨红玫瑰内生菌Saccharomyces 的镜检结果
Fig.8 Microscopic examination results of endophytic bacteria Saccharomyces in Rosa rugosa Thunb.
如图9 所示,墨红玫瑰内生菌Saccharomyces 生长曲线呈典型“S”型,0 ~4 h 为延迟期(OD600nm 值为0.05 ~0. 08),生长缓慢;8 ~16 h 为对数生长期(OD600nm值为0.32 ~2.00),快速增殖;20 ~28 h 为稳定期(OD600nm值为1.95 ~1.98),菌种的增殖与死亡平衡;32 ~36 h 为衰亡期(OD600nm值为1.98 ~1.48)。
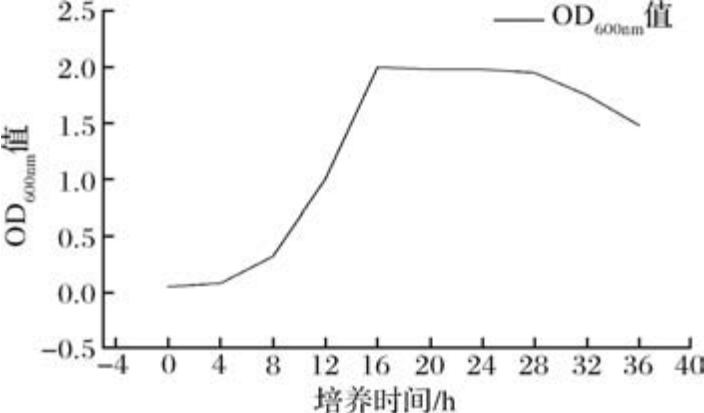
图9 墨红玫瑰内生菌Saccharomyces 的生长曲线
Fig.9 Growth curve of endophytic Saccharomyces from Rosa rugosa Thunb.
如图10 所示,MG-1 为墨红玫瑰中的优势内生菌Saccharomyces,菌种鉴定其为Saccharomyces cerevisiae,即酿酒酵母菌,与形态学观察和镜检的结果一致。
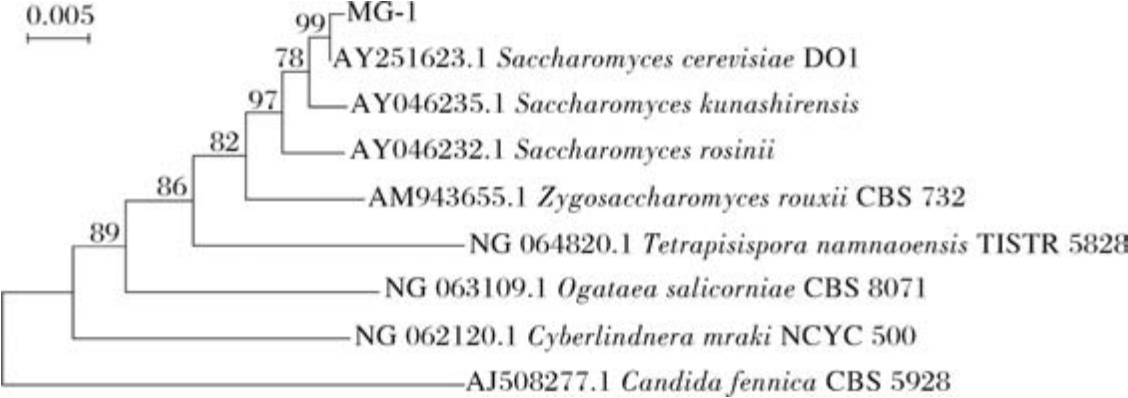
图10 墨红玫瑰内生菌Saccharomyces 的菌种鉴定结果
Fig.10 The results of strain identification of endophytic bacteria Saccharomyces in Rosa rugosa Thunb.
注:AY251623.1 S.cerevisiae DO1:AY251623.1 酿酒酵母DO1;AY046235.1 Saccharomyces kunashirensis:AY046235.1 库纳希岛酵母;AY046232.1 Saccharomyces rosinii:AY046232.1 罗氏酵母;AM943655.1 Zygosaccharomyces rouxii CBS 732:AM943655.1 鲁氏接合酵母CBS 732;NG 064820.1 Tetrapisispora nanhaoensis TISTR 5828:NG 064820.1 南浩四孢酵母TISTR 5828;NG 063109.1 Ogataea salicorniae CBS 8071:NG 063109.1 盐角木毕赤酵母CBS 8071;NG 062120.1 Cyberlindnera mrakii NCYC 500:NG 062120.1 姆拉克假丝酵母NCYC 500;AJ508277.1 Candida fennica CBS 5928:AJ508277.1 芬兰假丝酵母CBS 5928。
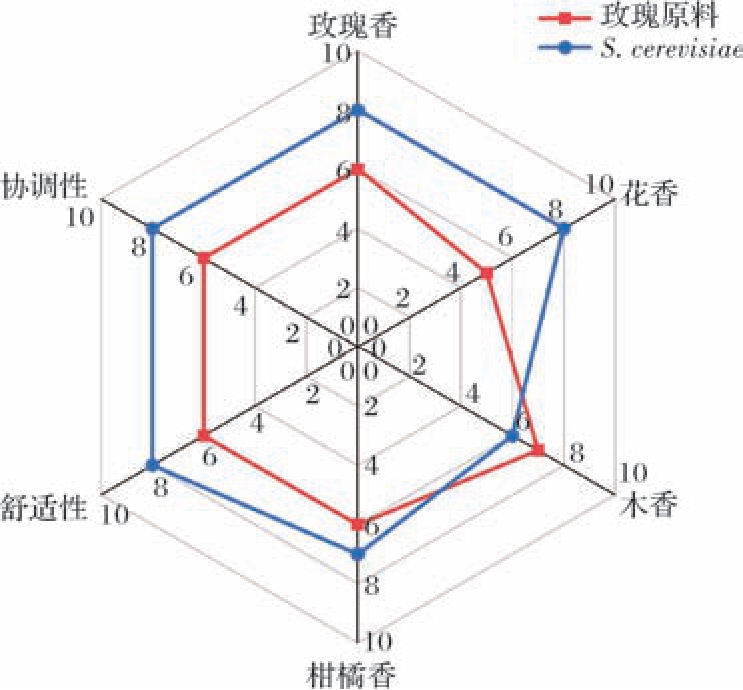
图11 S.cerevisiae 发酵墨红玫瑰24 h 后香气的感官剖面分析
Fig.11 Sensory profile analysis of aroma of Rosa rugosa Thunb.after 24 h fermentation by S.cerevisiae
2.4 S.cerevisiae 发酵墨红玫瑰的验证分析
如表3 所示,将S.cerevisiae 纯化富集后加入墨红玫瑰发酵24 h 后做验证试验,经SPME-GC-MS 检测其香气成分变化,墨红玫瑰的6 种核心香气成分(苯乙醇、香茅醇、香叶醇、玫瑰醚、芳樟醇、柠檬醛)的相对含量均有较大幅的提升:苯乙醇的相对含量由11.56%提升至17.26%,增幅为49.5%;香茅醇相对含量由23.97%提升至33.91%,增幅为41.5%;香叶醇相对含量从1.98%提升至4.05%,增幅为105.6%;玫瑰醚从0.55%提升至1.12%,增幅为103.64%;芳樟醇从0.41%提升至0.71%,增幅为73.17%;柠檬醛从0.16%提升至0.63%,增幅为293.75%,有效强化了墨红玫瑰的典型玫瑰香气特征。
表3 墨红玫瑰接种S.cerevisiae 发酵24 h 前后的SPME-GC-MS 结果
Table 3 The results of SPME-GC-MS before and after S.cerevisiae fermentation for 24 h by Rosa rugosa Thunb. inoculation
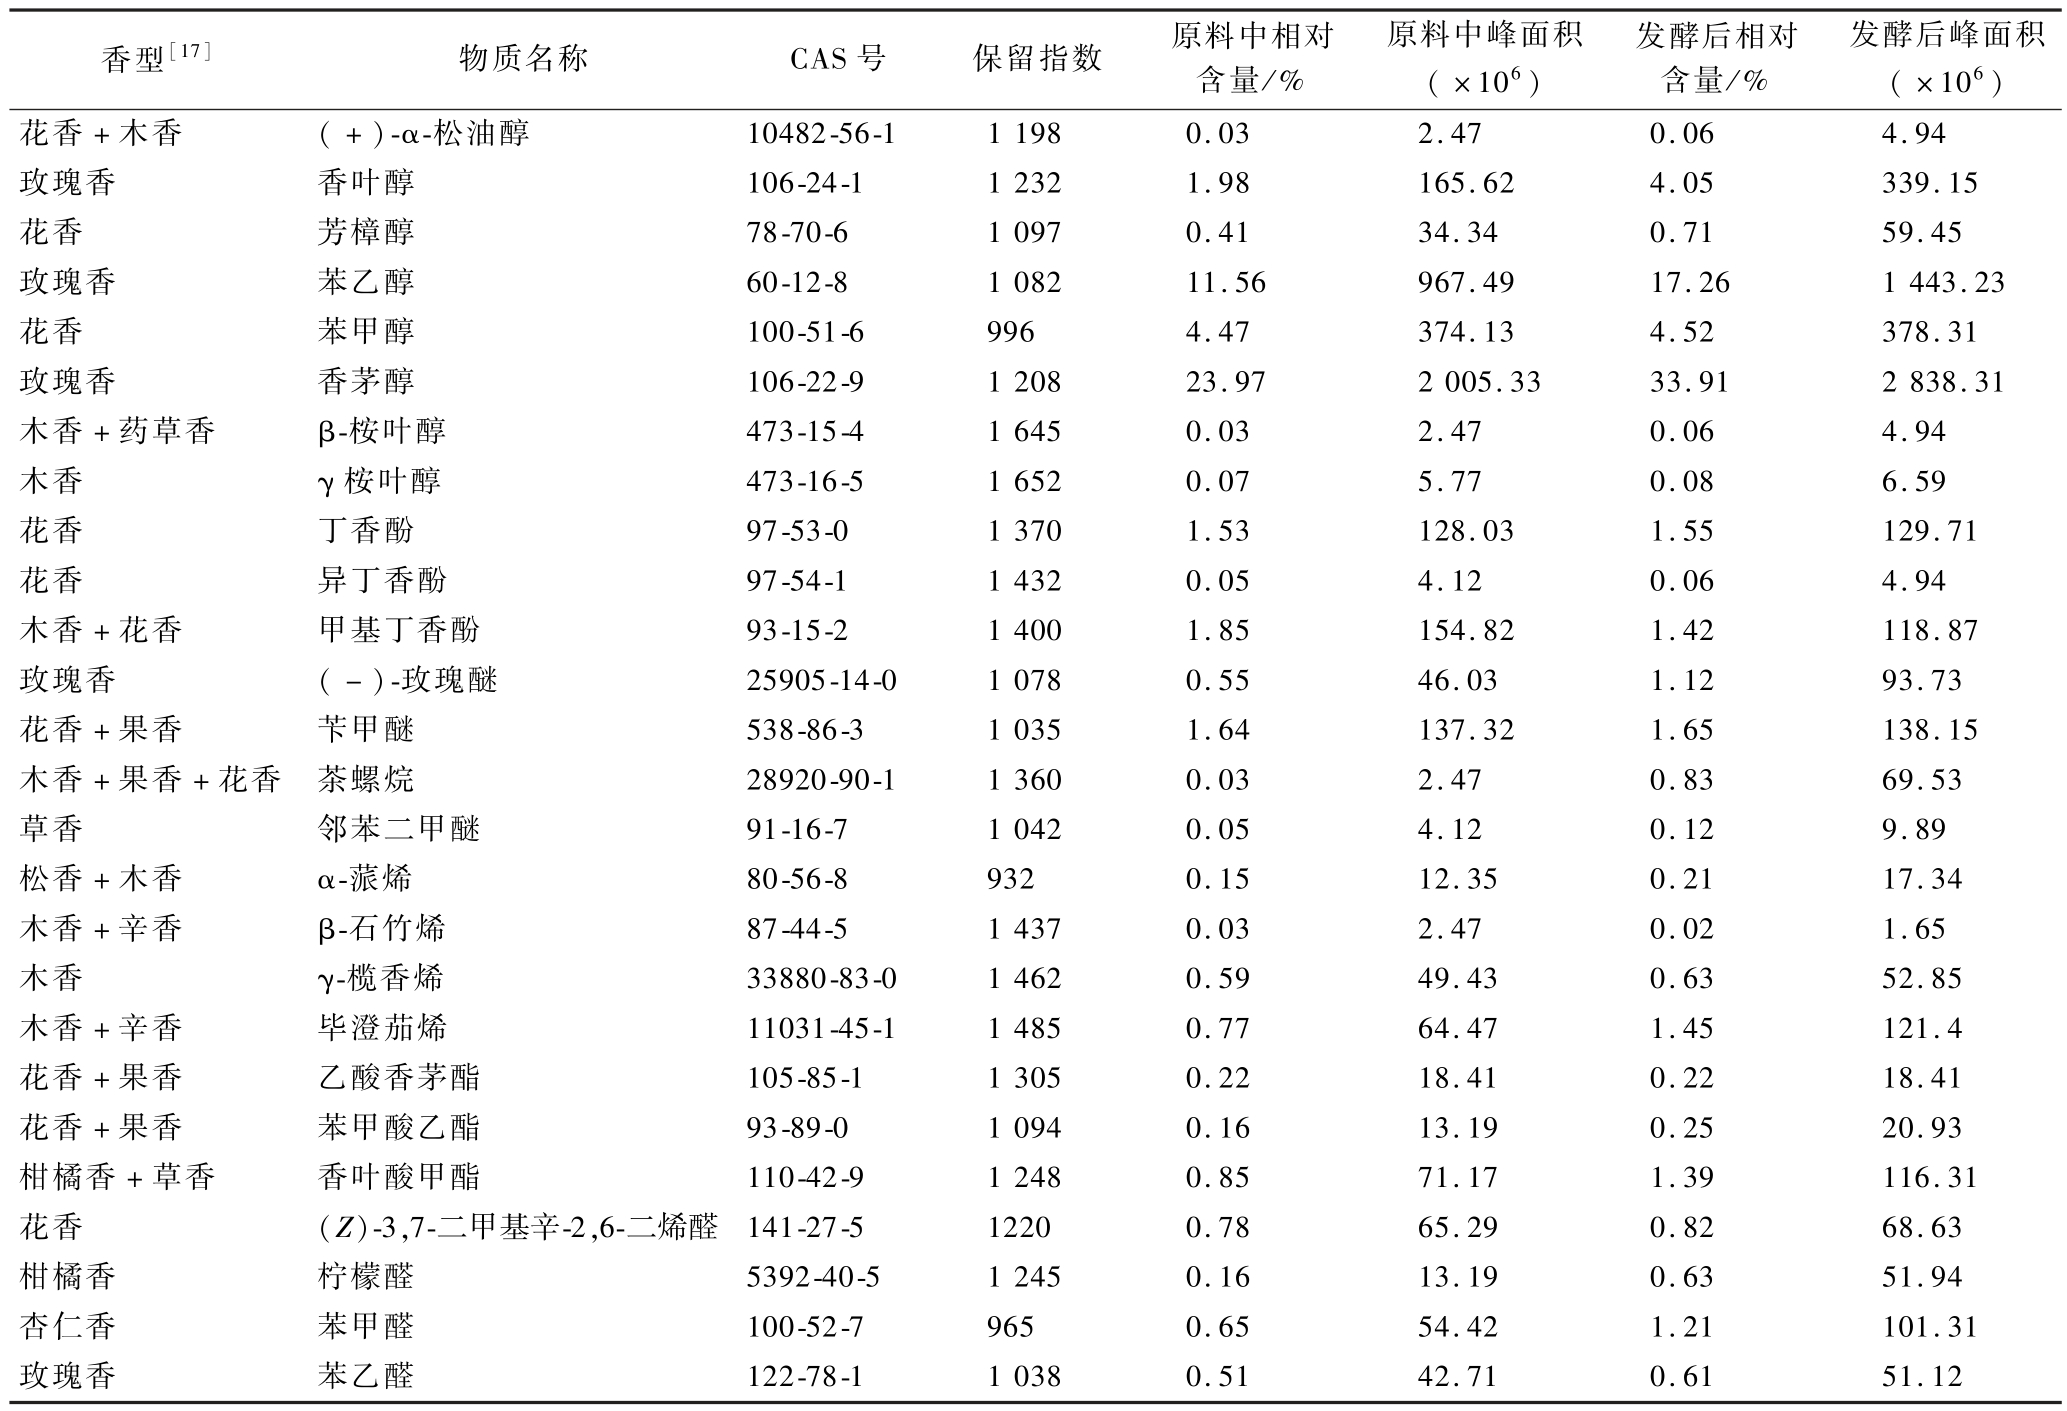
香型[17]物质名称CAS 号保留指数原料中相对含量/%原料中峰面积( ×106)发酵后相对含量/%发酵后峰面积( ×106)花香+木香( +)-α-松油醇10482-56-11 1980.032.470.064.94玫瑰香香叶醇106-24-11 2321.98165.624.05339.15花香芳樟醇78-70-61 0970.4134.340.7159.45玫瑰香苯乙醇60-12-81 08211.56967.4917.261 443.23花香苯甲醇100-51-69964.47374.134.52378.31玫瑰香香茅醇106-22-91 20823.972 005.3333.912 838.31木香+药草香β-桉叶醇473-15-41 6450.032.470.064.94木香γ 桉叶醇473-16-51 6520.075.770.086.59花香丁香酚97-53-01 3701.53128.031.55129.71花香异丁香酚97-54-11 4320.054.120.064.94木香+花香甲基丁香酚93-15-21 4001.85154.821.42118.87玫瑰香( -)-玫瑰醚25905-14-01 0780.5546.031.1293.73花香+果香苄甲醚538-86-31 0351.64137.321.65138.15木香+果香+花香 茶螺烷28920-90-11 3600.032.470.8369.53草香邻苯二甲醚91-16-71 0420.054.120.129.89松香+木香α-蒎烯80-56-89320.1512.350.2117.34木香+辛香β-石竹烯87-44-51 4370.032.470.021.65木香γ-榄香烯33880-83-01 4620.5949.430.6352.85木香+辛香毕澄茄烯11031-45-11 4850.7764.471.45121.4花香+果香乙酸香茅酯105-85-11 3050.2218.410.2218.41花香+果香苯甲酸乙酯93-89-01 0940.1613.190.2520.93柑橘香+草香香叶酸甲酯110-42-91 2480.8571.171.39116.31花香(Z)-3,7-二甲基辛-2,6-二烯醛 141-27-512200.7865.290.8268.63柑橘香柠檬醛5392-40-51 2450.1613.190.6351.94杏仁香苯甲醛100-52-79650.6554.421.21101.31玫瑰香苯乙醛122-78-11 0380.5142.710.6151.12
如图9 所示,S.cerevisiae 发酵墨红玫瑰24 h 的感官雷达图分析结果显示,发酵后的墨红玫瑰的玫瑰香型香气强度和花香型香气强度都较发酵前的香气强度具有较为明显的提升,发酵样品的香气舒适性与协调性也较发酵前更好,与SPME-GC-MS 检测的玫瑰发酵前后的香气质量及强度变化趋势一致,相互印证。
3 结论与讨论
本研究通过高通量测序、SPME-GC-MS 及多元统计分析技术,开展墨红玫瑰内生真菌群落结构解析、发酵演替规律及香气成分调控机制探究,探究核心功能菌株的增香效应及潜在作用路径,主要研究结果如下:
群落结构分析表明,墨红玫瑰内生真菌群落呈现较为显著的优势类群富集特征,核心优势门类为Ascomycota 和Basidiomycota,合计相对丰度超过95%;优势属类以Saccharomyces 为主导,相对丰度占比>50%,同时包含Sporobolomyces、Rhodotorula 等共生菌群,共同构成稳定的群落功能基础,这与蔷薇植物内生真菌群落的普遍分布规律一致[18-20]。
发酵过程中内生真菌群落呈现清晰的阶段性演替特征:0 h 为初始稳定状态,8 h 进入过渡启动期,16 ~24 h 为动态稳定状态,32 h 形成新的群落稳定态,其中24 h 为最优发酵时间节点;该时间点群落多样性(Shannon 指数)、均匀度(Simpson 指数)与丰度(Chao 指数)趋于均衡,OTU 数量较16 h 提升69.41%,为玫瑰香气物质的代谢合成提供了较为稳定的微生物生态条件。
SPME-GC-MS 检测联合多元统计分析表明,墨红玫瑰内生菌群发酵物中的酵母属与香叶醇、苯乙醇等玫瑰关键香气成分代谢生成呈极显著正相关性(P <0.05),而Fusarium、Colletotrichum 等属类对部分香气成分的代谢生成呈显著负相关作用,这一结果进一步印证了微生物群落结构与植物挥发性代谢产物的关联性规律。
功能菌株鉴定与验证实验表明,优势功能菌株为S.cerevisiae,该菌株在墨红玫瑰发酵验证实验中展现出突出的增香潜力;经其发酵墨红玫瑰24 h 后,玫瑰中的苯乙醇、香茅醇、香叶醇、玫瑰醚、芳樟醇、柠檬醛的相对含量的增幅分别为49.5%、41.5%、105.6%、103.64%、73.17%、293.75%。 推测其增香机制可能涉及2 个关键路径:一是通过菌株自身合成的特异性酶系催化萜类前体及芳香族化合物前体的生物转化,促进香气物质的合成;二是通过调控发酵体系中乙酰辅酶A 羧化酶、脂肪酸合成酶等关键基因的表达,强化香气合成通路的代谢通量,进而实现特征香气物质的高效积累[21-23]。
综上,墨红玫瑰内生真菌群落随发酵时间的演替与香气成分的合成积累存在紧密关联,实验筛选出的S. cerevisiae 可作为定向提升墨红玫瑰香料品质的核心功能菌株。 本研究为天然花香香料的发酵工艺优化及质量调控提供了理论依据与技术支撑,也为植物内生功能微生物资源的挖掘与高效利用提供一定的参考。
[1] 蒋力, 龙宪恩. 玫瑰深加工产品与开发研究进展[J]. 食品安全导刊, 2025(12):171 -175; 179.Jiang L, Long X E. Research progress on deep processing products and development of roses[J]. Food Safety Guide Magazine, 2025(12):171 -175; 179.
[2] 宁忻, 方伟, 董海燕, 等. 云南墨红玫瑰主要营养成分分析[J]. 现代食品, 2021(18):225 -228.Ning X, Fang W, Dong H Y, et al. Analysis and evaluation of the nutritional components in Rosa crimson glory[J]. Modern Food,2021(18):225 -228.
[3] 黄树增, 陈青, 赵多雷, 等. 大理州种植的加工型玫瑰品种及规范种植技术[J]. 现代园艺, 2018, 41(9):41 -42.Huang S Z, Chen Q, Zhao D L, et al. Processing rose varieties planted in Dali prefecture and their standardized planting techniques[J]. Xiandai Horticulture, 2018, 41(9):41 -42.
[4] 李彪, 罗永兰, 李自林. 甘南地区蔷薇科藏药植物资源调查研究[J]. 高原科学研究, 2018, 2(2):28 -33.Li B, Luo Y L, Li Z L. Resource of traditional Tibetan medicine Rosaceae in Gannan area[J]. Plateau Science Research, 2018, 2(2):28 -33.
[5] 王若雨.谭氏七味汤治疗轻度认知障碍的临床观察[D]. 武汉:湖北中医药大学,2024.Wang R Y. Clinical observation of Tan’s seven-flavor soup in the treatment of mild cognitive impairment[D]. Wuhan:Hubei University of Traditional Chinese Medicine,2024.
[6] 马俊辰, 李先平, 龚一帆, 等. 响应面法优化玫瑰酱肉苁蓉复合饮料工艺研究[J]. 中国调味品, 2024, 49(11):102 -109.Ma J C, Li X P, Gong Y F, et al. Optimization of process of rose sauce and Cistanche deserticola compound beverage by response surface method[J]. China Condiment, 2024, 49(11):102 -109.
[7] 赵艳侠, 赵玉龙, 张晶莹, 等. 玫瑰挥发性香气成分研究进展[J]. 青海农林科技, 2023(1):52 -55; 61.Zhao Y X, Zhao Y L, Zhang J Y, et al. Research progress of rose fragrance components[J]. Science and Technology of Qinghai Agriculture and Forestry, 2023(1):52 -55; 61.
[8] 杨玲.茉莉酸甲酯和脱落酸在诱导‘索邦’百合花香合成中的调控作用[D].上海:上海应用技术大学,2022.Yang L. Regulation of the synthesis of ‘Sorbonne’ lily flowers induced by MeJA and ABA[D]. Shanghai:Shanghai University of Applied Sciences,2022.
[9] 和丽媛, 杨志龙, 樊丹敏. 玫瑰功能成分及产品开发研究进展[J]. 食品工业科技, 2021, 42(14):408 -413.He L Y, Yang Z L, Fan D M. Research progress on functional components and product development of rose[J]. Science and Technology of Food Industry, 2021, 42(14):408 -413.
[10] Senol F S, Orhan I E, Kurkcuoglu M, et al. A mechanistic investigation on anticholinesterase and antioxidant effects of rose (Rosa damascena Mill.) [J]. Food Research International, 2013, 53(1):502 -509.
[11] 解雨佳, 李镇江, 沙飞宇, 等. 草莓内生菌的分离筛选及其功能特性[J]. 浙江农业学报, 2025, 37(12):2525 -2534.Xie Y J, Li Z J, Sha F Y, et al. Isolation, screening, and functional characteristics of endophytes from strawberry[J]. Acta Agriculturae Zhejiangensis, 2025, 37(12):2525 -2534.
[12] 赵杰, 田琼金, 聂蔓茹, 等. 红芸豆根腐病拮抗内生细菌的筛选和鉴定[J]. 山西农业科学, 2023, 51(10):1226 -1232.Zhao J, Tian Q J, Nie (M /W)R, et al. Screening and identification of antagonistic endophytic bacteria against pathogen of red kidney bean root rot[J]. Journal of Shanxi Agricultural Sciences,2023, 51(10):1226 -1232.
[13] 李海利, 杨帆, 陈建豪, 等. 类芽孢杆菌对携带NDM 基因的超级耐药大肠杆菌的抑菌活性分析[J]. 中国农业科技导报(中英文), 2025, 27(8):119 -131.Li H L, Yang F, Chen J H, et al. Analysis of bacteriostasis activity of Paenibacillus sp. against super drug-resistant Escherichia coli carrying NDM genes[J]. Journal of Agricultural Science and Technology, 2025, 27(8):119 -131.
[14] Mu W H, Zhao Y, Wang Z, et al. Combining lipase enzymatic techniques and antioxidants on the flavor of structured lipids (SLs)prepared from goat butter and coconut oil[J]. Food Bioscience,2024, 60:104332.
[15] 谭美, 卢丹, 叶之壮, 等. 酶法协同乳酸菌发酵制备风味强化型黄油及其挥发性风味物质解析[J]. 食品与发酵工业,2026, 52(11):145 -151.Tan M, Lu D, Ye Z Z, et al. Flavor-enhanced butter production via synergistic enzymatic hydrolysis and lactic acid bacteria fermentation:Characterization of volatile flavor compounds[J]. Food and Fermentation Industries, 2026, 52(11):145 -151.
[16] 周德庆. 四大类微生物菌落形态的比较和识别[J]. 微生物学通报, 1979, 6(2):43 -45.Zhou D Q. Comparison and identification of colony morphology of four kinds of microorganisms[J]. Microbiology, 1979, 6(2):43 -45.
[17] 程劼, 谢建春, 孙宝国. 国产玫瑰精油的化学成分及香气特征[J]. 中国食品添加剂, 2007, 18(5):66 -70.Cheng J, Xie J C, Sun B G. Composition and aromatic characteristics of rose essential oil produced in China[J]. China Food Additives, 2007, 18(5):66 -70.
[18] 张静怡, 赵龙飞, 刘梦洁. 植物内生菌多样性、功能及应用研究进展[J]. 微生物学报, 2025, 65(4):1446 -1468.Zhang J Y, Zhao L F, Liu M J. Progress in research concerning the diversity, function, and application of plant endophytes[J].Acta Microbiologica Sinica, 2025, 65(4):1446 -1468.
[19] 张锦锦, 孙雨婷, 郭烨, 等. 桑树内生菌的生物活性及应用前景[J]. 河北农业科学, 2023, 27(1):85 -90; 98.Zhang J J, Sun Y T, Guo Y, et al. Biological activity and application prospect of endophytes[J]. Journal of Hebei Agricultural Sciences, 2023, 27(1):85 -90; 98.
[20] 李媚媛, 刘安琪, 唐道埔, 等. 产香气化合物微生物的研究进展[J]. 食品科学, 2023, 44(19):259 -269.Li M Y, Liu A Q, Tang D (B /P), et al. Research progress on aroma-producing microorganisms [ J]. Food Science, 2023, 44(19):259 -269.
[21] 张永涛, 赵净沙, 蒋雁冰, 等. 代谢工程改造酵母生产香料的研究进展[J]. 日用化学工业, 2022, 52(6):645 -655.Zhang Y T, Zhao J S, Jiang Y B, et al. Research progress in yeast metabolic engineering to produce natural product flavors[J]. China Surfactant Detergent & Cosmetics, 2022, 52(6):645 -655.
[22] 刘德安, 王长丽, 丁昊, 等. 代谢工程改造酿酒酵母生产2,3-丁二醇的研究进展[J]. 中国酿造, 2018, 37(9):6 -11.Liu D A, Wang C L, Ding H, et al. Research progress of imporvement of 2,3-butanediol producing Saccharomyces cerevisiae by metabolic engineering[J]. China Brewing, 2018, 37(9):6 -11.
[23] 孙美莉, 刘虎虎, 邬文嘉, 等. 代谢工程改造酵母生产多不饱和脂肪酸的研究进展[J]. 化工进展,2016,35(3):872 -878.Sun M L, Liu H H, Wu W J, et al. Metabolic engineering of yeast to produce polyunsaturated fatty acids[J]. Chemical Industry and Engineering Progress, 2016, 35(3):872 -878.