芫根(Tibetan turnip),十字花科(Cruciferae)芸薹属(Brassica)植物,是青藏高原上的一种传统的药、食、饲三用的古老作物,主产于西藏、青海和四川等地[1-3]。 芫根营养成分丰富,其中的活性成分主要包括多糖、皂苷、黄酮、硫代葡萄糖苷、异硫氰酸酯、吲哚类、酚类、挥发性物质和碳水化合物等,其功效研究主要集中在耐缺氧、抗疲劳、降血糖、肝保护和肾保护等方面,多种功效赋予了芫根广阔的应用前景[4-7]。 目前芫根类产品主要包括液体饮料[8-10]、营养代餐[11]、咀嚼片[12]、果酒[13]以及酱菜[14]等形式,但整体开发程度仍处于初级阶段且少有产品进入市场。
近年来对芫根中活性物质的处理方法主要集中于水提。 刘晔峰[15]以芫根冻干粉灌胃小鼠,发现高剂量组[2 g/(kg bw·d)]相较于空白对照组常压耐缺氧存活时间提高了1.78 min;近期,王福清[16]采用水提醇沉的方法提取芫根多糖,提取工艺为料液比1∶20、提取温度100 ℃、提取时间4 h 和提取次数4次,用多糖对小鼠进行缺氧实验验证,发现多糖在一定程度上能够改善高原缺氧现象。 赵文瑾[17]采用梯度乙醇沉淀法分离得到BRP-20、BRP-40、BRP-60 和BRP-80 四种芫根多糖级分,通过小鼠实验验证发现高剂量芫根多糖BRP-80 干预后的小鼠相较于空白组小鼠的力竭游泳时间提高了22.75 min,相较于红景天苷阳性对照组提高了7 min。
作为一种高效的生物转化方法,微生物发酵技术能够显著提高中草药有效成分的提取效率并增强其药理活性,微生物代谢过程中会产生各种酶类,如纤维素酶、果胶酶、糖苷酶等,能够有效分解植物细胞壁,释放出更多的活性成分[18]。 与传统提取方法相比,液体发酵具有生产周期大大缩短、接种方便、能有目的地获得所需的次生代谢产物等优点。
郑若男等[19]将平菇菌作为发酵菌株对绿茶进行发酵,发现平菇菌在生长过程中能够分泌多酚氧化酶和氨基酸等次生代谢产物,从而可以去除茶叶中的苦涩感,同时还能够提高茶叶中氨基酸和多糖等活性成分,提升茶叶的品质。 同时,平菇菌(Pleurotus ostreatus)也是人们日常食用的大型食用菌之一,具备降低血脂和胆固醇的能力,其含有的多糖具有抗肿瘤活性。 因此,采用平菇-芫根共发酵可能提高芫根的功能活性,并赋予芫根产品更广泛的功能,但目前对平菇-芫根共发酵尚未有报道。
本研究以芫根为主要原料,平菇菌为出发菌种,通过单因素试验和正交试验优化其液体发酵培养基配方和初始pH。 通过建立小鼠常压耐缺氧模型和亚硝酸钠中毒模型,评估共发酵产物的耐缺氧效果,并揭示其抗缺氧机制,旨在为芫根发酵液在耐缺氧功能食品或药物开发中的应用提供科学依据。
1 材料与方法
1.1 材料与试剂
SPF 级昆明种小鼠72 只,雄性,体质量(20 ±2) g,实验动物生产许可证号:SCXK(豫)2020-0005,所有小鼠在实验开始前均适应性饲养7 d,饲养环境保持12 h 光照/12 h 黑暗周期,昼夜规律。
芫根块茎产地为新疆阿克苏柯坪,经60 ℃烘干并粉碎(60 目),4 ℃保存备用;平菇菌购自北纳创联生物科技有限公司,在广东省微生物菌种保藏中心进行保藏,菌体保藏编号为GIM5.360;超氧化物歧化酶(superoxide dismutase,SOD)活力检测试剂盒、丙二醛(malondialdehyde,MDA)含量检测试剂盒、还原型谷胱甘肽(glutathione,GSH)含量检测试剂盒,北京索莱宝科技有限公司;红景天苷(分析对照品),上海麦克林生化科技股份有限公司。
1.2 仪器与设备
Infinite M200 Pro 多功能酶标仪,瑞士Tecan;ML204 电子分析天平,梅特勒-托利多仪器(上海)有限公司;YXQ-LS-30SII 高压灭菌锅,山东欧莱博医疗器械有限公司;SKY-2102 恒温摇床,上海沉汇仪器有限公司;GR22G 高速冷冻离心机,上海继谱电子科技有限公司;YJ-875 超净工作台,北京中科鸿翔净化科技有限公司。
1.3 实验方法
1.3.1 培养基的配制
固体种子培养基(g/L):马铃薯浸粉10,葡萄糖20,KH2 PO4 3,MgSO4·7H2O 1.5,硫胺素0.01,琼脂15,pH 值为6.0 ±0.2(25 ℃),121 ℃灭菌20 min。
液体种子培养基(g/L):马铃薯浸粉10,葡萄糖20,KH2PO4 3,MgSO4·7H2 O 1.5,硫胺素0.01,pH 值为6.0 ±0.2 (25 ℃),121 ℃灭菌20 min。
液体发酵基础培养基(g/L):KH2PO4 2,MgSO4·7H2O 1,芫根粉20,pH 值为6.0 ±0.2 (25 ℃),121 ℃灭菌20 min。
1.3.2 平菇菌种的活化
从-20 ℃冰箱中取出平菇菌种斜面,在无菌操作台内从斜面上取下1 cm2 菌块接种于液体种子培养基中,加入10 粒无菌的3 mm 玻璃珠,26 ℃,160 r/min摇床培养7 d,获得平菇菌种子液。
1.3.3 发酵培养基及发酵初始pH 优化
1.3.3.1 单因素实验与正交试验
葡萄糖添加量对发酵的影响:在液体发酵基础培养基中分别添加0、30、40、50、60、70、80 g/L 的葡萄糖,选取最佳葡萄糖添加量;在上述实验的基础上将酵母提取物的添加量设为0、6、9、12、15、18、21 g/L进行实验,选取最佳酵母提取物添加量;在上述实验的基础上将发酵初始pH 分别设定为3. 5、4. 5、5.5、6.5、7. 5、8. 5,选取最佳发酵初始pH;在上述实验的基础上,将芫根添加量设定为10、20、30、40、50 g/L,选取最佳芫根添加量。 根据各单因素试验结果设计正交试验确定平菇菌发酵芫根的最佳培养条件。
1.3.3.2 发酵液各指标检测
基础发酵培养基接入8% 种子液后,26 ℃,160 r/min 摇床发酵7 d,发酵结束后,将发酵液进行灭菌处理,检测各指标。
菌体干重:取50 mL 发酵液,10 000 r/min 离心10 min,去除上清液,剩余菌丝体用蒸馏水洗涤3 次后,置于37 ℃烘箱干燥至恒重。 通过重量分析法测定平菇菌丝体的质量[20]。
发酵液多糖含量测定:取10 mL 发酵液上清液,加入3 倍体积的无水乙醇,4 ℃醇沉12 h 后,12 000 r/min离心10 min,弃上清液,加入10 mL 去离子水使多糖复溶,然后用苯酚硫酸法测定多糖含量[19]。
1.3.4 小鼠耐缺氧实验
1.3.4.1 小鼠实验剂量的设计和分组
小鼠按体重随机分为12 笼,每笼6 只,2 笼(12只)为一组;实验中严格遵守实验动物福利伦理原则和要求审批(伦理审批号为No.LLSC20240301)。 分别设置空白对照组[灌胃生理盐水10 mL/(kg bw·d)],阳性对照组[灌胃红景天苷150 mg/(kg bw·d)],阴性对照组[灌胃芫根水提液80 mL/(kg bw·d)],发酵液低剂量组[10 mL/(kg bw·d)],发酵液中剂量组[40 mL/(kg bw·d)],发酵液高剂量组[80 mL/(kg bw·d)],将每组小鼠灌胃药物进行浓缩或稀释处理,保证每只小鼠灌胃体积相同。 在小鼠经过7 d 适应期后,每日上午9 ~10 时进行灌胃,连续给药21 d。
1.3.4.2 小鼠耐缺氧实验指标检测
小鼠体重测定:分别在灌胃1、7、14、21 d 对小鼠体重进行称量并记录。
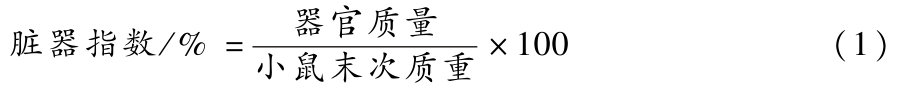
脏器指数测定:参考张苗等[21]的方法,将小鼠肝脏组织用生理盐水洗涤,吸水称重(g),脏器指数计算如公式(1)所示:
常压耐缺氧实验:末次灌胃1 h 后,将各组小鼠分别放入盛有5 g 钠石灰的250 mL 磨口瓶内(每瓶1只),用凡士林涂抹瓶口,盖严后立即计时,以呼吸停止为死亡标准,记录小鼠存活时间。 小鼠死亡后,解剖取内脏和脑, -20 ℃保存待测。
亚硝酸钠中毒存活实验:末次灌胃1 h 后,将各组小鼠按照240 mg/kg bw 剂量腹腔注射亚硝酸钠(注射量为0.1 mL/10 g),立即计时,记录小鼠存活时间。
为进一步探究其耐缺氧机制,通过检测小鼠脑、肺组织含水量,结合苏木精-伊红(hematoxylin-eosin staining,HE)染色切片观察组织病理学变化,同时,采用生化分析方法测定血清及肝脏中SOD、GSH 和MDA 含量,以评估氧化应激水平;此外,通过检测小鼠6 项外周血象指标(包括红细胞计数、血红蛋白浓度等),综合分析平菇-芫根发酵液对血液系统的影响。
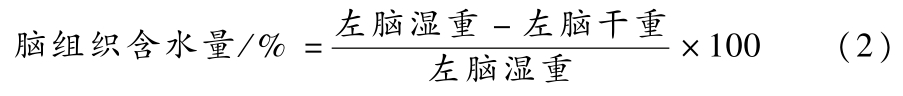
小鼠脑、肺组织含水量检测:根据Chen 等[22]方法进行脑组织含水量的测定。 用锡箔纸包裹好后在80 ℃的恒温干燥箱中连续干燥72 h,干燥期间需要对组织反复称量,直到称量的干重不再变化,记录数据。 小鼠肺组织含水量测定如公式(2)所示:
将小鼠眼球取血,取血后静置30 min,使血液凝固,离心后取血清,置于-20 ℃冰箱保存待测。 取小鼠脑、肺组织,将其固定于4% 多聚甲醛溶液中24 h后,进行石蜡包埋、切片、染色,电子光镜下进行病理分析。 小鼠心、肝和肺组织置于生理盐水中,保藏于-20 ℃待测。 SOD、GSH 和MDA 含量根据试剂盒进行检测;红细胞计数(red blood count,RBC)、血红蛋白( hemoglobin, HGB)、 红细胞压积( hematocrit,HCT)、平均红细胞体积(mean corpuscular volume,MCV)、平均红细胞血红蛋白量(mean corpuscular hemoglobin,MCH)和平均红细胞血红蛋白浓度(mean corpuscular hemoglobin concentration,MCHC)采用血细胞分析仪检测。
1.4 数据分析
所有实验均进行3 次重复,实验数据采用SPSS 25.0 软件对数据进行单因素方差分析(ANOVA 法),以P <0.05 表示显著性差异。 图表采用Origin 2018绘制。
2 结果与分析
2.1 发酵优化
2.1.1 单因素试验
大量文献报道芫根多糖以及平菇多糖均具有耐缺氧能力,因此本实验以发酵液中多糖为主指标,平菇菌体生物量为辅助指标对发酵培养基进行优化。由图1 可知,平菇发酵芫根培养基的碳源添加量、氮源添加量、芫根添加量以及发酵初始pH 均是影响芫根多糖的重要因素,并且多糖含量、总酚含量和生物量变化具有一定的同步性。

图1 不同因素对平菇-芫根发酵液多糖含量和菌体生物量的影响
Fig.1 Effects of different factors on polysaccharide content and mycelial biomass in fermented liquid of P.ostreatus and T.turnip root
注:不同小写字母表示差异显著(P <0.05)(下同)。
由图1-a 可知,发酵液中的多糖和生物量随着葡萄糖浓度的增加而增加,葡萄糖浓度超过60 g/L后逐渐下降,这可能是由于溶液的渗透压增大,平菇菌丝的生长受到抑制,从而使代谢减弱。 由图1-b 和图1-c 可知,多糖含量随着酵母提取物添加量和pH增大而增加,当酵母提取物为15 g/L、pH 6.5 时达到最大。 由图1-d 可知,随着芫根添加量的增加,多糖含量增加,生物量逐渐减小,并且在发酵过程中菌球较小,可能是由于添加芫根粉末会增大发酵培养基中渗透压,导致生物量较低,最优芫根添加量为30 g/L。
2.1.2 正交试验
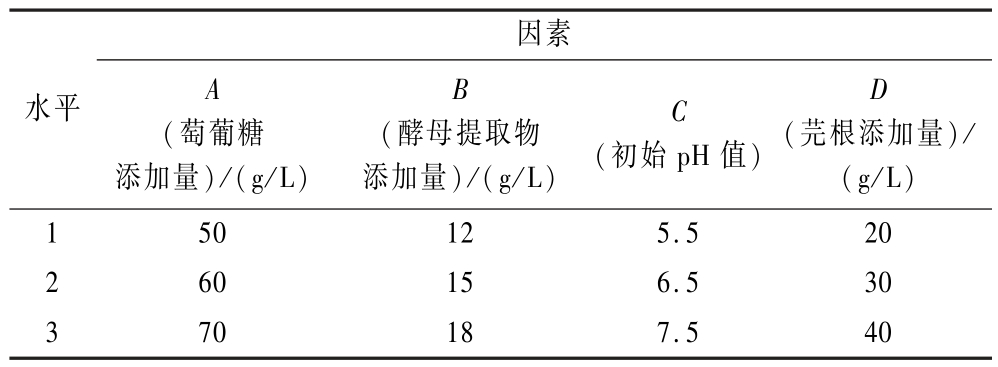
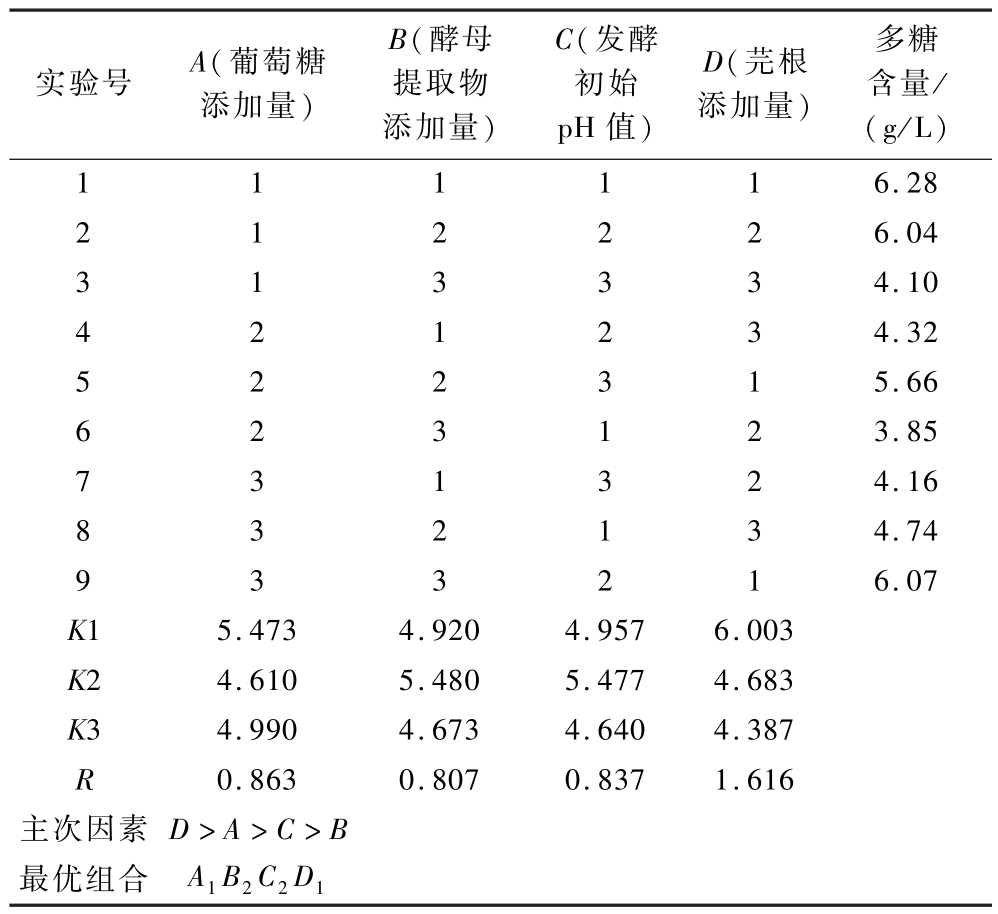
每个因素分别选择较优的3 水平设计正交试验,见表1。 如表1 所示,正交试验及结果见表2。 由表2可知,各因素对平菇-芫根发酵液多糖含量影响程度依次为芫根添加量(D) >葡萄糖添加量(A) >发酵初始pH(C) >酵母提取物添加量(B),芫根添加量是主要影响因子,因此发酵培养基的渗透压对发酵影响较大。 最优组合为A1 B2 C2 D1,将该组合和正交试验第1 组进行验证。 经验证,正交试验第1 组多糖含量为6.3 g/L,最优组合多糖含量为7.5 g/L。 因此确定最优组合发酵培养基配方为最终配方,即葡萄糖添加量50.0 g/L,酵母提取物15. 0 g/L,初始发酵pH 6.5,芫根添加量20.0 g/L。
表1 L9(34)正交试验因素水平表
Table 1 L9(34) Orthogonal test factor level table
因素水平A(萄葡糖添加量)/(g/L)B D(酵母提取物添加量)/(g/L)C(初始pH 值)(芫根添加量)/(g/L)1 50125.520 60156.530 3 70187.540 2
表2 正交试验及结果
Table 2 Orthogonal experiments and results
实验号A(葡萄糖添加量)B(酵母提取物添加量)C(发酵初始pH 值)D(芫根添加量)多糖含量/(g/L)1 1 1 116.28 2 226.04 3 1 3 334.10 1 2 234.32 5 2 2 315.66 4 2 1 123.85 7 3 1 324.16 6 2 3 134.74 9 3 3 216.07 8 3 2 K15.4734.9204.9576.003 K24.6105.4805.4774.683 K34.9904.6734.6404.387 R0.8630.8070.8371.616主次因素 D >A >C >B最优组合 A1 B2 C2 D1
优化后平菇-芫根发酵液中多糖含量为7.5 g/L,未发酵的芫根培养基多糖含量为3.39 g/L,未加芫根的平菇菌发酵培养基中多糖含量为1.2 g/L,发酵后较发酵前多糖含量提高了56.4%,说明平菇-芫根共发酵能够使多糖含量增加。
2.2 芫根发酵液耐缺氧作用的研究
2.2.1 平菇-芫根发酵液对小鼠体重及脏器指数的影响
图2 展示了连续21 d 各组灌胃药物对小鼠体重的影响。 从图中可以看出,在第1 ~21 天,小鼠的体重逐渐增加,且芫根发酵液低、中、高剂量组小鼠的体重增加和空白组相比没有显著差异,说明芫根发酵液对小鼠的体重不会造成不良影响。 计算常压耐缺氧死亡后小鼠的内脏指数,如表3 为小鼠心、肝、脾、肺和肾器官的体指数,可看出芫根发酵液灌胃对小鼠内脏指数无显著影响。
表3 平菇-芫根发酵液对小鼠内脏指数的影响( ±SD)单位:%
Table 3 Effects of P.ostreatus and T.turnip root fermentation liquid on visceral index in mice( ±SD)
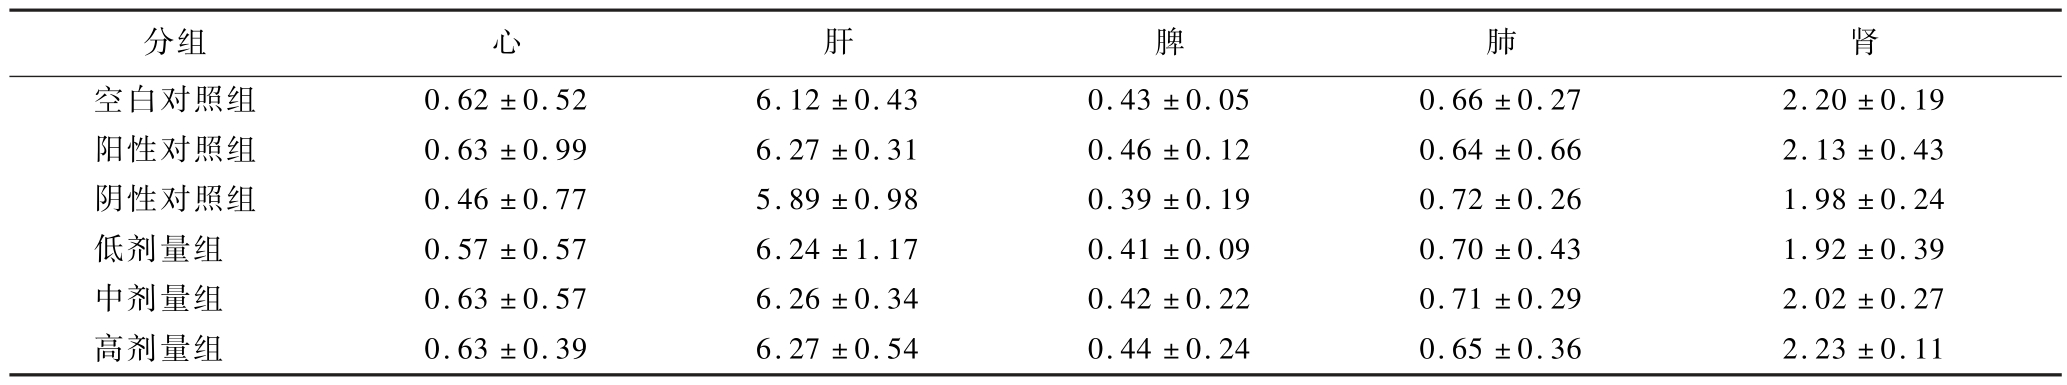
分组心肝脾肺肾空白对照组0.62 ±0.526.12 ±0.430.43 ±0.050.66 ±0.272.20 ±0.19阳性对照组0.63 ±0.996.27 ±0.310.46 ±0.120.64 ±0.662.13 ±0.43阴性对照组0.46 ±0.775.89 ±0.980.39 ±0.190.72 ±0.261.98 ±0.24低剂量组 0.57 ±0.576.24 ±1.170.41 ±0.090.70 ±0.431.92 ±0.39中剂量组 0.63 ±0.576.26 ±0.340.42 ±0.220.71 ±0.292.02 ±0.27高剂量组 0.63 ±0.396.27 ±0.540.44 ±0.240.65 ±0.362.23 ±0.11
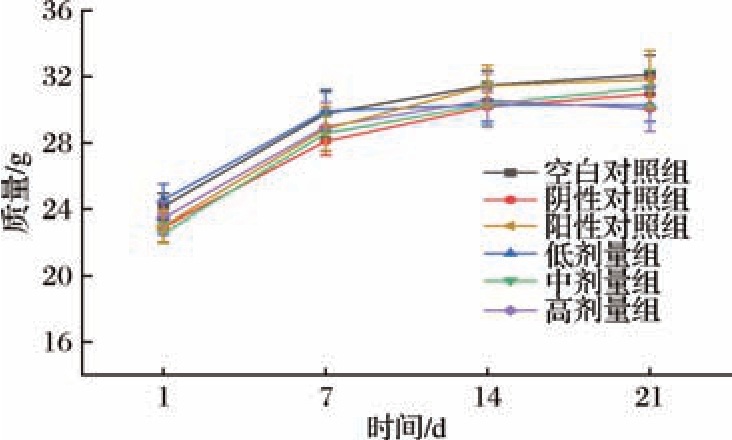
图2 平菇-芫根发酵液对小鼠体重的影响
Fig.2 Effects of P.ostreatus and T.turnip root fermentation liquid on body weight in mice
2.2.2 平菇-芫根发酵液对小鼠缺氧的影响
图3 为小鼠常压耐缺氧存活时间和亚硝酸钠中毒存活时间,平菇-芫根发酵液低剂量组和中剂量组小鼠常压耐缺氧和亚硝酸钠中毒存活时间与阴性对照组和阳性对照组无显著差异(P >0.05),但均高于空白对照组,且存在显著差异(P <0.05)。 由图3 可知,小鼠常压耐缺氧和亚硝酸钠中毒存活时间最长的组为芫根发酵液高剂量组,分别为29.88 min 和25.0 min,相较于阴性对照组分别提高了32.5%和12.61%,且具有显著性差异(P <0.05),即高剂量组平菇-芫根发酵液的常压耐缺氧实验、亚硝酸钠中毒存活实验结果呈阳性,根据《保健食品检验与评价方法(2023 版)》中耐缺氧功能结果判定可知,该受试样品具有耐缺氧的作用。 所以芫根发酵液高剂量组能够有效增强小鼠的缺氧耐受力,且其效果呈现剂量依赖性。
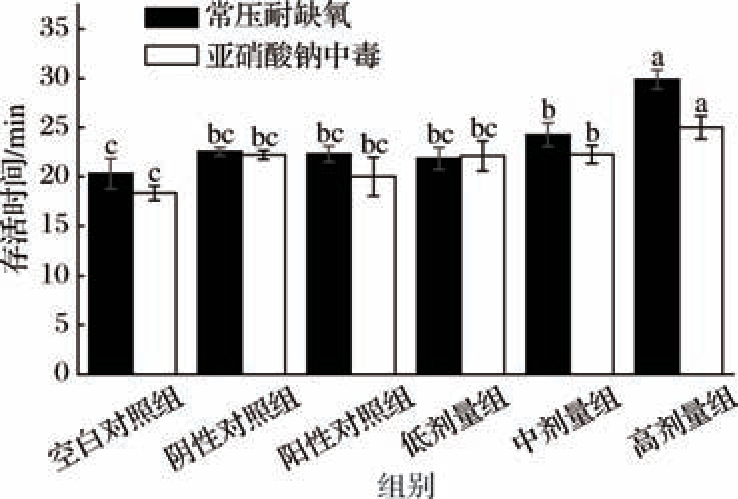
图3 小鼠耐缺氧存活时间
Fig.3 Hypoxia tolerance survival time of mice
2.2.3 小鼠六项外周血象指标的影响显著高于空白对照组和阴性对照组,其中高剂量灌胃组RBC 和HCT 高于阳性对照组,且存在显著差异(P <0.05),说明芫根发酵液能有效提高小鼠呼吸时的氧利用率,有效提高血液的携氧量,因而使小鼠常压耐缺氧存活时间和亚硝酸钠中毒时间都得到了相应的延长[23]。
表4 平菇-芫根发酵液不同灌胃剂量对小鼠六项外周血象指标的影响( ±SD)
Table 4 Effects of different doses of P.ostreatus and T.turnip root fermentation liquid administered via gastric lavage on six peripheral blood parameters in mice ( ±SD)
表4 是不同灌胃组小鼠6 项外周血象指标,可看出芫根发酵液低、中、高剂量组RBC、HGB 和HCT 均
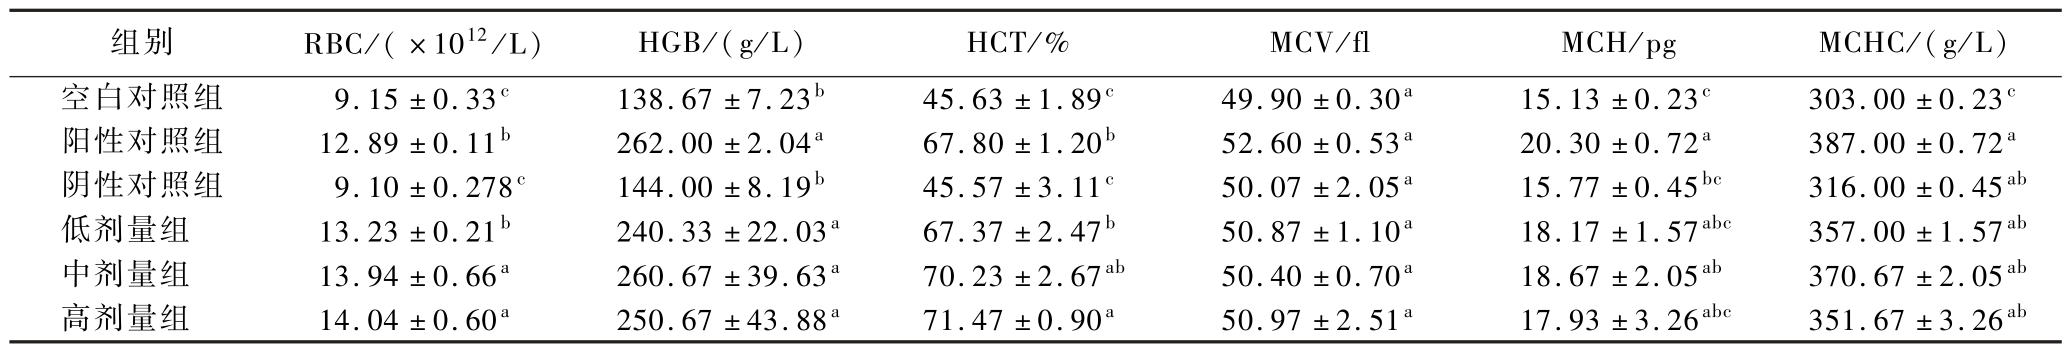
组别RBC/( ×1012 /L)HGB/(g/L)HCT/%MCV/flMCH/pgMCHC/(g/L)空白对照组9.15 ±0.33c138.67 ±7.23b45.63 ±1.89c49.90 ±0.30a15.13 ±0.23c303.00 ±0.23c阳性对照组12.89 ±0.11b262.00 ±2.04a67.80 ±1.20b52.60 ±0.53a20.30 ±0.72a387.00 ±0.72a阴性对照组9.10 ±0.278c144.00 ±8.19b45.57 ±3.11c50.07 ±2.05a15.77 ±0.45bc316.00 ±0.45ab低剂量组 13.23 ±0.21b240.33 ±22.03a67.37 ±2.47b50.87 ±1.10a18.17 ±1.57abc357.00 ±1.57ab中剂量组 13.94 ±0.66a260.67 ±39.63a70.23 ±2.67ab50.40 ±0.70a18.67 ±2.05ab370.67 ±2.05ab高剂量组 14.04 ±0.60a250.67 ±43.88a71.47 ±0.90a50.97 ±2.51a17.93 ±3.26abc351.67 ±3.26ab
注:不同小写字母表示差异显著(P <0.05)(下同)。
2.2.4 平菇-芫根发酵液对小鼠血清中氧化应激相关指标的影响
SOD 和GSH 是重要的内源性抗氧化应激酶,能清除自由基及其代谢产物,MDA 是脂质过氧化降解的重要产物之一,能提示细胞是否存在氧化应激损伤状态。 由图4 可知,平菇-芫根发酵液中、高剂量组小鼠血清中SOD 和GSH 含量显著高于空白对照组和阴性对照组,(P <0.05);高剂量灌胃组小鼠血清中MDA 含量显著低于空白对照组、阴性对照组和阳性对照组(P <0.05)。 平菇-芫根发酵液可能通过增强机体抗氧化防御系统,减轻氧化应激损伤,从而发挥其潜在的耐缺氧作用[24]。

图4 小鼠血清SOD、GSH、MDA 测定结果
Fig.4 Results of SOD, GSH, and MDA in mouse serum
2.2.5 平菇-芫根发酵液对小鼠内脏中氧化应激相关指标的影响
图5 为各组小鼠心脏、肝脏和肺中SOD、GSH 和MDA 含量检测结果,其中芫根发酵液灌胃组小鼠心脏、肝脏和肺中SOD、GSH 含量均显著高于空白组、阴性对照组,MDA 含量均显著低于空白对照组和阳性对照组(P <0.05)。 平菇-芫根发酵液可提高小鼠血清及内脏中SOD、GSH 的活力,显著降低小鼠血清及内脏组织中MDA 的水平,说明平菇-芫根发酵液能提高内源性抗氧化应激酶的活力,缓解氧化应激对机体的损伤,减轻脂质过氧化对细胞膜的损伤,使得平菇-芫根发酵液具有耐缺氧功能[25-27]。
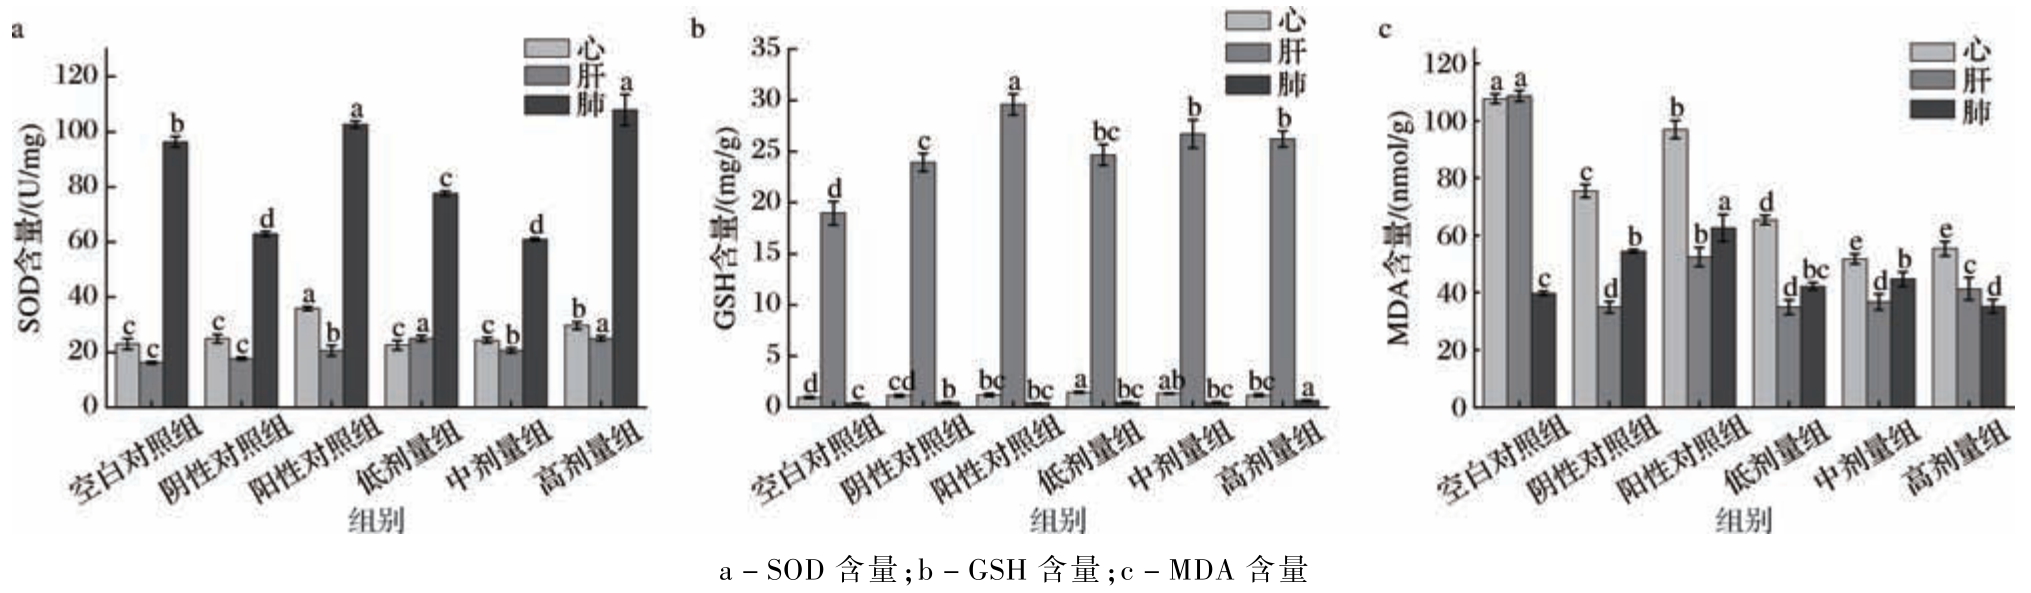
图5 小鼠内脏SOD、GSH、MDA 测定结果
Fig.5 Results of SOD, GSH, and MDA in mouse viscera
2.2.6 平菇-芫根发酵液对小鼠脑组织和肺组织含水量的影响
缺氧会导致小鼠脑和肺组织含水量出现一定量的增加,由图6 可看出,平菇-芫根发酵液低、中、高剂量组小鼠的肺和脑组织含水量显著低于空白对照组、阴性对照组和阳性对照组(P <0.05)。 说明芫根发酵液能够一定程度上减小缺氧引起的脑部和肺部水肿,从而减小对机体带来的损害[28]。
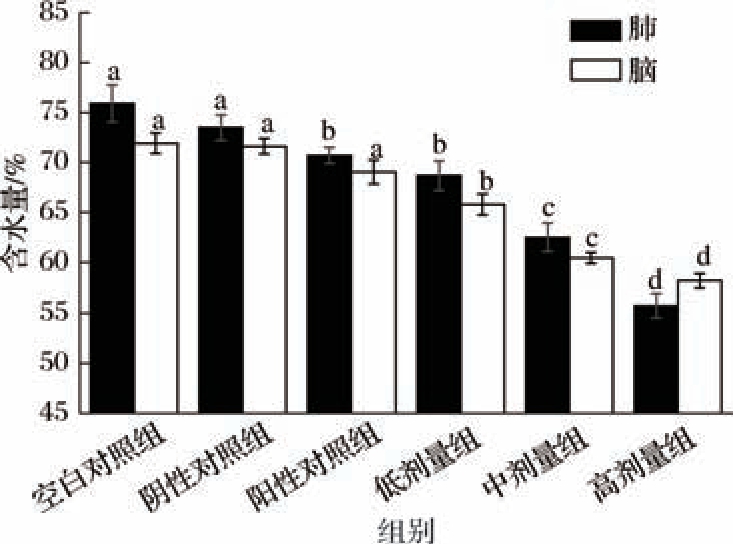
图6 小鼠肺和脑含水量的测定结果
Fig.6 Measurement results of water content in mouse lungs and brains
2.2.7 平菇-芫根发酵液对小鼠脑组织和肺组织病理变化的影响
图7 为各组小鼠脑海马体CA1 区,由图可知,空白组(图7-a)小鼠大脑海马CA1 区神经元排列紊乱,神经元细胞减少且细胞间隙增大,部分神经元核固缩,神经元肿胀,细胞周质空间扩大,说明缺氧会导致小鼠脑组织发生一定程度的水肿;而由图7-c、图7-e、图7-f 可以看出经过阳性对照组、平菇-芫根发酵液中、高剂量组干预后,小鼠脑海马CA1 区神经元细胞排列整齐,细胞肿大的情况变少,几乎不见神经元核固缩,水肿情况明显好转,脑组织损伤明显减轻。
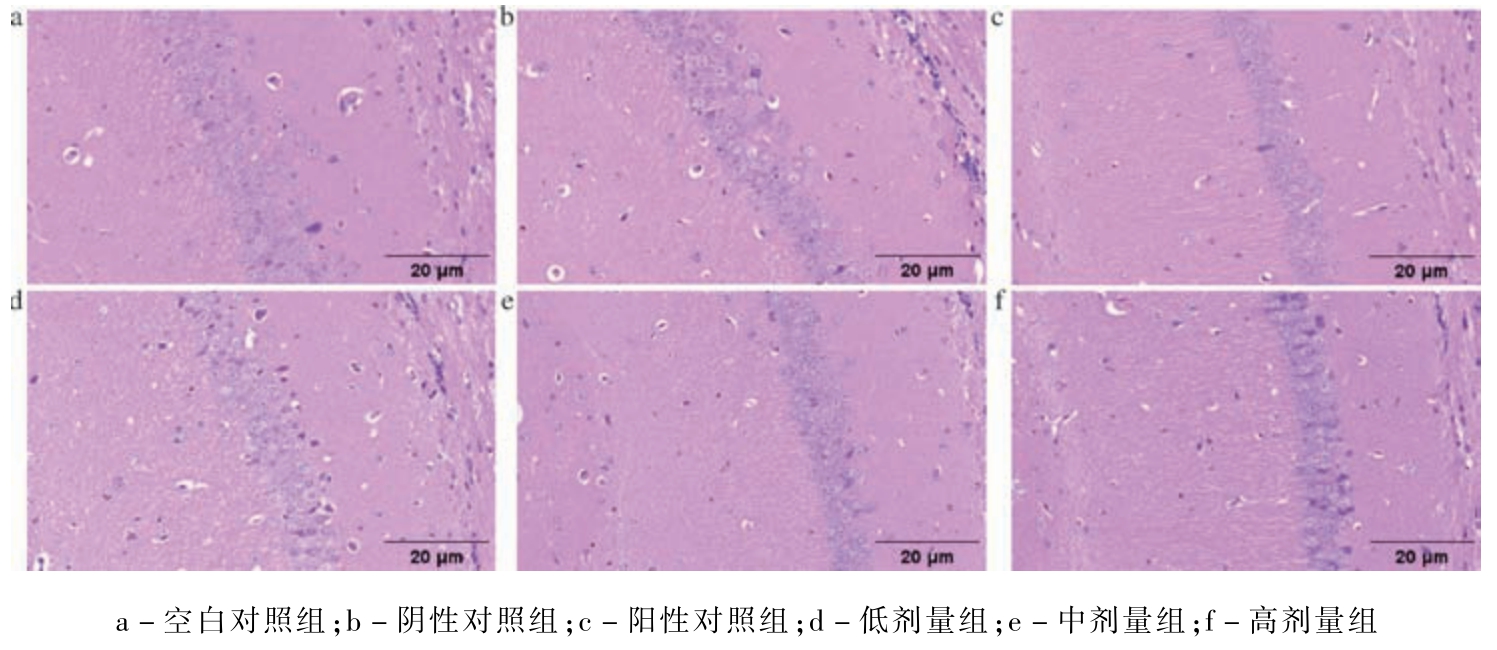
图7 各组小鼠脑组织HE 染色切片(40 ×)
Fig.7 HE-stained brain tissue sections from each group of mice (40 ×)
未干预的小鼠肺组织在显微镜下肺泡结构正常且肺泡大小相似,肺泡充气良好,肺泡间质清晰、薄厚均匀,容易辨认。 由图8-a 可看出,空白组中肺泡间隔明显变宽,肺泡腔几乎不成形,大小不一,肺泡间隔细胞数明显增加,而图8-f 可看出,芫根发酵液高剂量组小鼠肺泡大小比较一致,红细胞渗出量减小,肺泡间隔宽度稍有增加。 说明高剂量芫根发酵液能够有效改善由缺氧肺部水肿导致的小鼠的肺泡增厚,血管破裂以及降低红细胞渗出。

图8 各组小鼠肺组织HE 染色切片(10 ×)
Fig.8 HE-stained lung tissue sections from each group of mice (10 ×)
3 结论与讨论
本研究通过单因素实验和正交设计分析得出了平菇菌发酵芫根的最佳培养基配方和发酵初始pH,即葡萄糖50.0 g/L,酵母提取物15.0 g/L,芫根添加量20.0 g/L,KH2PO4 2.0 g/L,MgSO4·7H2O 1.0 g/L,初始发酵pH 6.5,优化后的平菇-芫根发酵液中多糖含量为7.5 g/L,较发酵前提高了56.4%。 利用小鼠实验对平菇-芫根发酵液耐缺氧功能进行验证,结果显示,经过平菇-芫根发酵液高剂量组灌胃21 d 的小鼠相较于阴性对照组的小鼠常压耐缺氧存活时间延长了34%,亚硝酸钠中毒存活时间延长了25%,且具有显著性差异(P <0.05)。
谭秀娟等[29]证实芫根总多糖具有抗高原缺氧的作用,其机制可能涉及增强抗氧化能力、携氧能力及激活PI3K/Akt/HIF-1α 等信号通路。 多糖的抗氧化能力与其分子量、单糖组成、糖苷键类型及空间构象密切相关,这些抗氧化活性有助于清除机体在缺氧状态下产生的过量活性氧,保护线粒体功能,减少氧化损伤,从而延长缺氧存活时间。 血红蛋白是氧气和二氧化碳的“搬运工”,在机体呼吸过程中起着重要的作用,当机体发生缺氧时,肾脏开始分泌促红细胞生成素刺激骨髓造血干细胞,促进红细胞的生成。 随着RBC 的增加,红细胞中含有的血红蛋白合成增多,所以HGB 会升高,HCT 也相应升高,从而红细胞在血液中的占比会增大,目的是提高血液运输氧气的能力,以缓解缺氧状况[24]。 研究发现,芫根多糖对高原低氧诱导的脑损伤具有明显的保护作用,其机制可能与减轻氧化应激损伤、通过激活PI3K/Akt/HIF-1α 信号通路抑制细胞凋亡以及逆转代谢途径紊乱有关[30],通过HIF-1α 调节低氧下的细胞代谢,减轻活性氧对线粒体的损伤,从而在低氧时起到保护作用。本研究证实平菇-芫根发酵液能够降低小鼠血清、肝脏、心脏和肺组织中MDA 含量,提升SOD 和GSH 水平,提高血液中RBC、HGB 和HCT 等含量,并且可以改善小鼠脑部和肺部的水肿、改善小鼠大脑海马体神经元排列紊乱和肺部细胞损伤。
平菇在发酵过程中可产生丰富的次级代谢产物,包括糖类及其衍生物、氨基酸、脂肪酸类、肽类等,这些代谢产物具有增强免疫和改善微循环的作用。 平菇菌丝体中的多糖和硒蛋白[31-32]等成分已被证明具有抗氧化作用,可能通过减轻氧化应激来间接提升机体的缺氧耐受性。 与单一芫根提取物相比,共发酵体系可能存在更强的效应,本研究中未发酵的芫根培养基多糖含量为3.39 g/L,未加芫根的平菇菌发酵培养基中多糖含量为1.2 g/L,当两者共发酵后发酵液中多糖含量为7.5 g/L,比单一发酵时多糖含量增加,这可能是因为平菇中纤维素酶对芫根原料中的大分子多糖进行降解或结构修饰,产生分子量更小、生物利用度更高的活性成分。 因此,基于平菇发酵的特性,平菇-芫根共发酵后发酵液中的多糖、氨基酸、酚酸等多类物质可能通过不同通路产生协同增效作用,形成多靶点的耐缺氧保护网络。
综上,平菇-芫根共发酵液的耐缺氧功效很可能是一个多组分、多通路协同作用的结果。 其中,经微生物转化后的多糖发挥主要作用,该研究为利用生物转化技术提升芫根耐缺氧功能及相关保健品开发提供了理论依据。 今后仍需通过成分分离鉴定、细胞信号通路及多指标动物实验,进一步阐明其具体构效关系与协同机制。
[1] Chen Z E, Wufuer R, Ji J H, et al. Structural characterization and immunostimulatory activity of polysaccharides from Brassica rapa L.[J]. Journal of Agricultural and Food Chemistry, 2017, 65(44)9685 -9692.
[2] Paul S, Geng C A, Yang T H, et al. Phytochemical and healthbeneficial progress of turnip (Brassica rapa)[J]. Journal of Food Science, 2019, 84(1):19 -30.
[3] Liu W, Liu Z J, Fan X N, et al. Brassica rapa L. Polysaccharide mitigates hypobaric hypoxia-induced oxidation and intestinal damage via microbiome modulation[J]. NPJ Science of Food,2024,8(1):112.
[4] Cartea M E, Francisco M, Soengas P, et al. Phenolic compounds in Brassica vegetables[J]. Molecules, 2011, 16(1):251 -280.
[5] Wu Q, Bang M H, Lee D Y, et al. New indoles from the roots of Brassica rapa ssp. campestris[J]. Chemistry of Natural Compounds,2012, 48(2):281 -284.
[6] Wu Q, Cho J G, Lee D S, et al. Carbohydrate derivatives from the roots of Brassica rapa ssp. campestris and their effects on ROS production and glutamate-induced cell death in HT-22 cells[J]. Carbohydrate Research, 2013, 372:9 -14.
[7] Lee J G, Bonnema G, Zhang N W, et al. Evaluation of glucosinolate variation in a collection of turnip (Brassica rapa) germplasm by the analysis of intact and desulfo glucosinolates[J]. Journal of Agricultural and Food Chemistry, 2013, 61(16):3984 -3993.
[8] 牛元霖. 芫根多糖合生元饮料缓解低压低氧小鼠肠道损伤的微生态调控机制研究[D]. 兰州:兰州大学, 2025.NIU Y L. Study on the microbiological regulation mechanism of pueraria root polysaccharide synbiotic drink in alleviating intestinal damage in hypobaric hypoxic mice [D]. Lanzhou:Lanzhou University, 2025.
[9] 王铖, 朱红康, 王辞婉, 等. 芫根复合维生素饮料的制作及其抗疲劳功能评价[J]. 饮料工业, 2023, 26(1):3 -12.Wang C, Zhu H K, Wang C W, et al. Anti-fatigue effect and sensory evaluation of Brassica rapa. L multivitamin beverage[J]. Beverage Industry, 2023, 26(1):3 -12.
[10] 王辞婉, 王铖, 朱红康, 等. 青海芫根提取物抗疲劳活性及其风味饮料的研究[J]. 饮料工业, 2022, 25(2):8 -14.Wang C W, Wang C, Zhu H K, et al. Study on anti-fatigue activity of extracts from Brassica rapa L. and its flavor beverage[J].Beverage Industry, 2022, 25(2):8 -14.
[11] 张艳珍, 王菲, 曹文秀, 等. 芫根藜麦营养代餐粉的制备与配方优化[J]. 保鲜与加工, 2023, 23(12):30 -37.Zhang Y Z, Wang F, Cao W X, et al. Preparation and formula optimization of Brassica rapa L. And quinoa nutritional meal replacement powder[J]. Storage and Process, 2023, 23(12):30 -37.
[12] 乔明锋, 郝婉婷, 蔡雪梅, 等. 一种芫根咀嚼片配方优化及特性[J]. 食品工业, 2021, 42(11):70 -75.Qiao M F, Hao W T, Cai X M, et al. The optimum formulation and characteristics of a chewable tablet of Brassica rapa L[J]. The Food Industry, 2021, 42(11):70 -75.
[13] 张文刚.芫根枸杞果酒发酵工艺优化研究[J]. 青海农林科技,2023(4):6 -11.Zhang W G. Study on optimization of fermentation process for Brassica rapa Chinese wolfberry fruit wine[J]. Science and Technology of Qinghai Agriculture and Forestry, 2023(4):6 -11.
[14] 卢雪松, 何琴, 彭毅秦, 等. 芫根牦牛酸醡肉酱的研发[J]. 中国调味品, 2020, 45(1):140 -146.Lu X S, He Q, Peng Y Q, et al. Development of sour yak meat sauce with Brassica rapa[J]. China Condiment, 2020, 45(1):140 -146.
[15] 刘晔峰. 以西藏芫根为主成分的抗缺氧功能食品研究[D]. 杭州:浙江大学, 2012.LIU Y F. Research on anti-hypoxic functional foods with Tibetan Angelica root as the main ingredient [D]. Hangzhou:Zhejiang University, 2012.
[16] 王福清. 芫根多糖的提取及其抗缺氧能力研究[J]. 中国调味品, 2024, 49(6):195 -199.Wang F Q. Study on extraction and anti-hypoxia ability of polysaccharides from Brassica rapa L[J]. China Condiment, 2024, 49(6):195 -199.
[17] 赵文瑾. 芫根多糖提取、分离及抗疲劳机理研究[D]. 无锡:江南大学, 2021.ZHAO W J. Study on the extraction, separation, and anti-fatigue mechanism of polysaccharides from pueraria root[D]. Wuxi:Jiangnan University, 2021.
[18] 江青东, 聂芙蓉. 中药发酵的特点及研究现状[J]. 现代牧业,2021, 5(4):47 -50; 56.Jiang Q D, Nie F R. Chinese medicine fermentation characteristics and latest research current status[J]. Modern Animal Husbandry,2021, 5(4):47 -50; 56.
[19] 郑若男, 陈晓英, 林晨. 平菇发酵茶提高绿茶品质研究[J].福建农业科技, 2016, 47(9):36 -39.Zheng R N, Chen X Y, Lin C. Study on quality improvement of green tea fermented by oyster mushroom[J]. Fujian Agricultural Science and Technology, 2016, 47(9):36 -39.
[20] 赵丽娜, 徐军伟. 过表达GDP-D-甘露糖焦磷酸化酶(GMP)基因提高灵芝多糖的生产[J]. 菌物学报,2021,40(5):1099 -1109.Zhao L N, Xu J W. Overexpression of GDP-D-mannose pyrophosphorylase(GMP)gene improves the production of polysaccharides in Ganoderma lingzhi[J]. Mycosystema, 2021, 40(5):1099 -1109.
[21] 张苗, 乔宏萍, 周玉平, 等. 发酵中药渣对小鼠生长性能及肠道菌群的影响[J]. 饲料工业, 2025, 46(9):124 -131.Zhang M, Qiao H P, Zhou Y P, et al. Effects of fermented Chinese medicine residue on growth performance and intestinal flora in mice[J]. Feed Industry, 2025, 46(9):124 -131.
[22] Chen S J, Yang J F, Kong F P, et al. Overactivation of corticotropin-releasing factor receptor type 1 and aquaporin-4 by hypoxia induces cerebral edema[J]. Proceedings of the National Academy of Sciences of the United States of America, 2014, 111(36):13199 -13204.
[23] Li D, Ren J W, Wang T X, et al. Anti-hypoxia effects of walnut oligopeptides (Juglans regia L.) in mice[J]. American Journal of Translational Research, 2021, 13(5):4581 -4590.
[24] Terraneo L, Paroni R, Bianciardi P, et al. Brain adaptation to hypoxia and hyperoxia in mice[J]. Redox Biology,2017,11:12 -20.
[25] Hu J P, Zhao X P, Ma X Z, et al. Effects of cigarette smoke on aerobic capacity and serum MDA content and SOD activity of animal[J]. International Journal of Clinical and Experimental Medicine, 2014, 7(11):4461 -4465.
[26] Duan J L, Wang J W, Guan Y, et al. Safflor yellow A protects neonatal rat cardiomyocytes against Anoxia/reoxygenation injury in vitro[J]. Acta Pharmacologica Sinica, 2013, 34(4):487 -495.
[27] Ferreira-Cravo M, Moreira D C, Hermes-Lima M. Glutathione depletion disrupts redox homeostasis in an Anoxia-tolerant invertebrate[J]. Antioxidants, 2023, 12(6):1197.
[28] Wang C, Yan M Y, Jiang H, et al. Protective effects of puerarin on acute lung and Cerebrum injury induced by hypobaric hypoxia via the regulation of aquaporin (AQP) via NF-κB signaling pathway[J]. International Immunopharmacology, 2016, 40:300 -309.
[29] 谭秀娟, 李古兵, 张淼, 等. 芫根总多糖对模拟高原缺氧小鼠的作用研究[J]. 华西药学杂志, 2020, 35(2):171 -175.Tan X J, Li G B, Zhang M, et al. Effects of total polysaccharides of Brassica rapa on hypoxic mice in simulated plateau[J]. West China Journal of Pharmaceutical Sciences, 2020, 35 (2):171-175.
[30] Zou X M, Yang H L, Li Q Y, et al. Protective effect of Brassica rapa polysaccharide against acute high-altitude hypoxia-induced brain injury and its metabolomics[J]. Oxidative Medicine and Cellular Longevity, 2022, 2022:3063899.
[31] 周威, 申红佳, 甘泉, 等. 平菇液态发酵多糖与其子实体多糖抗氧化活性对比[J]. 食品工业科技,2026,47(5):428 -434.Zhou W, Shen H J, Gan Q, et al. Comparative study on antioxidant activities of liquid fermented and fruiting body polysaccharides from Pleurotus ostreatus[J]. Science and Technology of Food Industry, 2026, 47(5):428 -434.
[32] 滕丹. 富硒平菇含硒蛋白质提取工艺与功能初步研究[D]. 恩施:湖北民族大学, 2024.TENG D. Preliminary study on the extraction process and function of selenium rich protein from Pleurotus ostreatus[D]. Enshi:Hubei Minzu University, 2024.