解脂耶氏酵母(Yarrowia lipolytica)是一种非常规二态性酵母,常存在于富含烷烃和脂肪的环境中[1]。 其被美国食品药品监督管理局鉴定为“公认安全使用物质”(generally recognized as safe, GRAS)菌株[2]。 另外Y.lipolytica 具有许多的代谢优势,如高通量三羧酸循环(tricarboxylic acid cycle,TCA 循环),倾向于脂质积累等[3-4],且其还具有碳源谱广的特征,能够利用脂肪酸等碳源进行生长代谢[5-6]。 目前Y.lipolytica 已用于合成各种产品,例如合成柠檬酸[7]等大宗化学品及萜类等药效成分[8-9]。
β-榄香烯(β-elemene)是由我国首先从姜科植物温莪术(Curcuma aromatica Salisb)中提取的倍半萜,具有广谱抗肿瘤活性[10],能够对非小细胞肺癌(nonsmall cell lung cancer, NSCLC)[11],神经胶质瘤以及结直肠癌等癌症[12-13]起显著治疗作用。 吉马烯A是β-榄香烯的合成前体,可以自发的进行分子间Cope 重排合成β-榄香烯。
β-榄香烯的主要来源为药用植物温莪术的分离与提取,然而温莪术中β-榄香烯的含量低,分离纯化的难度较大,难以实现其大规模生产与应用。 随着合成生物学的不断发展,利用微生物来实现天然药物的生物合成已经成为实验的研究热点[8]。 目前以代谢工程手段已成功实现β-榄香烯的异源合成[14-17]。本课题组近期以Y. lipolytica 为宿主,通过葡萄糖初始碳源与甘油补充碳源的组合策略,实现了52.53 g/L的产量[17]。 Liu 等[18]通过融合表达关键酶、增强甲羟戊酸途径(mevalonate pathway, MVA)通量、下调竞争途径关键基因表达水平、优化吉马烯A 合成酶(germacrene A synthase, GAS)拷贝数以及调节脂质代谢的途径,使得吉马烯A 产量在发酵优化后达到了39 g/L,这是目前报道Y. lipolytica 中较高的吉马烯A 产量,而由于吉马烯A 经热重排后可接近100%转化为β-榄香烯,该研究为β-榄香烯的高效合成提供了新思路(图1)。 此外Dai 等[19]通过上述类似途径,外加增强β-氧化途径和引入异戊烯醇利用途径(isopentenyl utilization pathway, IUP)改善了β-榄香烯的合成,最终产量达到了3.08 g/L(表1)。
表1 工程菌株中β-榄香烯的异源合成
Table 1 Heterologous production of β-elemene in engineered strains
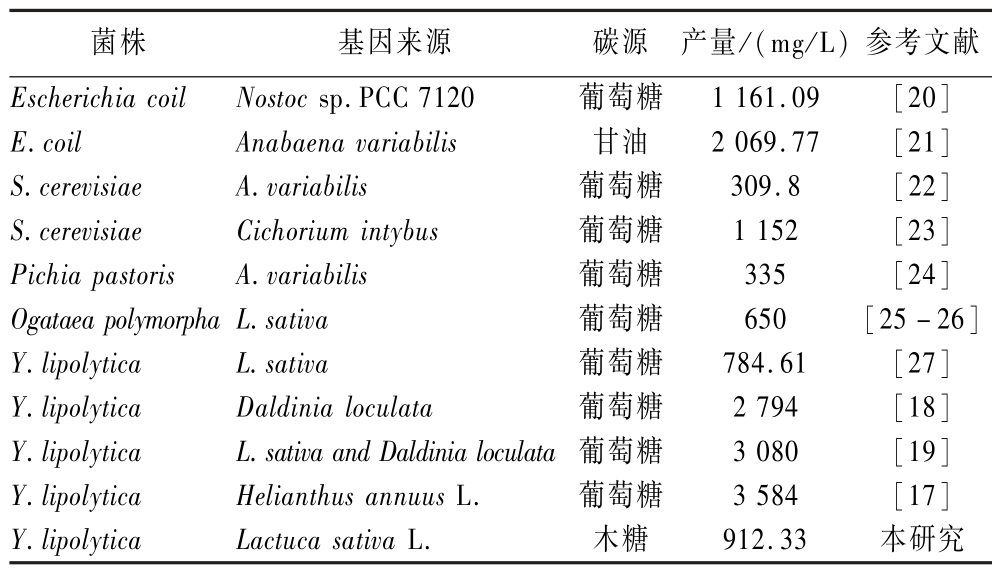
菌株基因来源碳源 产量/(mg/L) 参考文献Escherichia coilNostoc sp.PCC 7120葡萄糖1 161.09[20]E.coilAnabaena variabilis甘油2 069.77[21]S.cerevisiaeA.variabilis葡萄糖309.8[22]S.cerevisiaeCichorium intybus葡萄糖1 152[23]Pichia pastorisA.variabilis葡萄糖335[24]Ogataea polymorpha L.sativa葡萄糖650[25 -26]Y.lipolyticaL.sativa葡萄糖784.61[27]Y.lipolyticaDaldinia loculata葡萄糖2 794[18]Y.lipolyticaL.sativa and Daldinia loculata 葡萄糖3 080[19]Y.lipolyticaHelianthus annuus L.葡萄糖3 584[17]Y.lipolyticaLactuca sativa L.木糖912.33本研究
注:大肠杆菌(Escherichia coli);酿酒酵母(Saccharomyces cerevisiae);毕赤酵母(Komagataella pastoris);多形汉逊酵母(Ogataea polymorpha);念珠藻PCC 7120(Nostoc sp. PCC 7120);多变鱼腥藻(Anabaena variabilis);菊苣(Cichorium intybus);莴苣(Lactuca sativa);轮层炭壳菌(Daldinia loculata);向日葵(Helianthus annuus L.)。
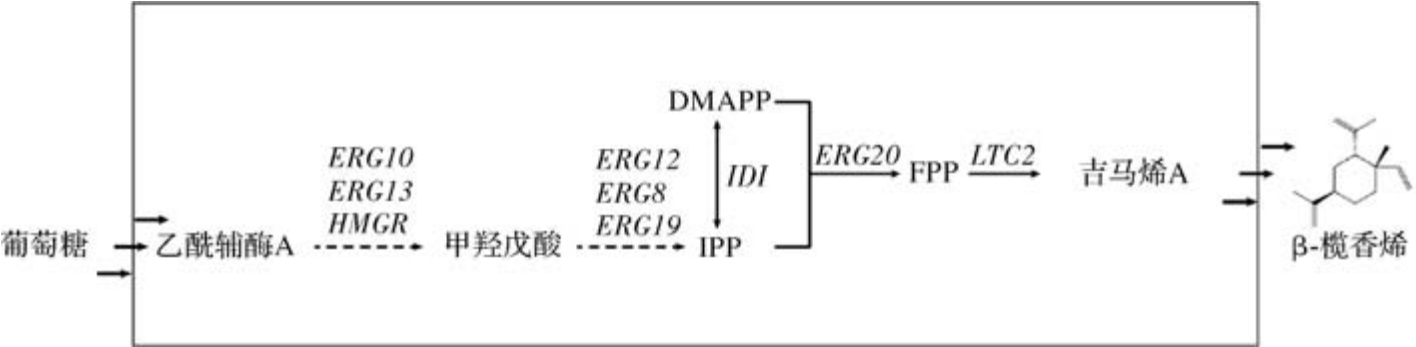
图1 β-榄香烯在解脂耶氏酵母中的合成途径示意图
Fig.1 Schematic diagram of β-elemene biosynthetic pathway in Y.lipolytica
注:二甲基烯丙基二磷酸(dimethylallyl pyrophosphate, DMAPP);异戊二烯二磷酸盐(isopentenyl pyrophosphate,IPP);法尼基二磷酸(farnesyl pyrophosphate,FPP)。
木质纤维,作为地球上最丰富的可再生生物质资源,广泛分布于能源作物、木材以及粮食作物秸秆中,其主要化学成分为纤维素、半纤维素和木质素。 而葡萄糖和木糖是纤维素水解产物中最丰富的糖类。 然而许多天然微生物不能利用木糖进行生长代谢,故需借助合成生物学来实现木糖的高效利用。 例如研究人员通过在S. cerevisiae 中导入木糖代谢途径,成功实现了木糖的生物转化[28-29]。 在β-榄香烯合成研究领域,现有报道均采用葡萄糖、甘油等碳源结合不同宿主体系完成,木糖作为碳源的相关研究尚未见诸文献。
本研究基于实验室前期构建的人工木糖原养型菌株LE-00,首先通过CRISPR/Cas9 技术整合莴苣来源的LTC2,获得菌株LE-01,其产量为(7.23 ±0.21) mg/L。通过柔性 Linker ( GGGGS ) 构建融合蛋白ERG20LLTC2,整合表达该蛋白,所得菌株LE-04,产量为(67. 84 ±6. 25) mg/L。 进一步通过强化MVA途径,解除胞内代谢网络对MVA 途径的调控,所得菌株LE-08 的β-榄香烯产量达(274.63 ±4.2) mg/L,为LE-01 产量的38 倍。 采用单因素分析及Box-Behnken 响应面分析等手段探索出最佳的发酵条件:木糖、酵母提取物、蛋白胨质量浓度分别为80、39.86、17.93 g/L。 以上述培养基在有挡板的锥形瓶中发酵,β-榄香烯的最大产量为(912.33 ±70.93) mg/L,相较于初始产量提高了120.75%。
1 材料与方法
1.1 材料与试剂
1.1.1 菌株与质粒
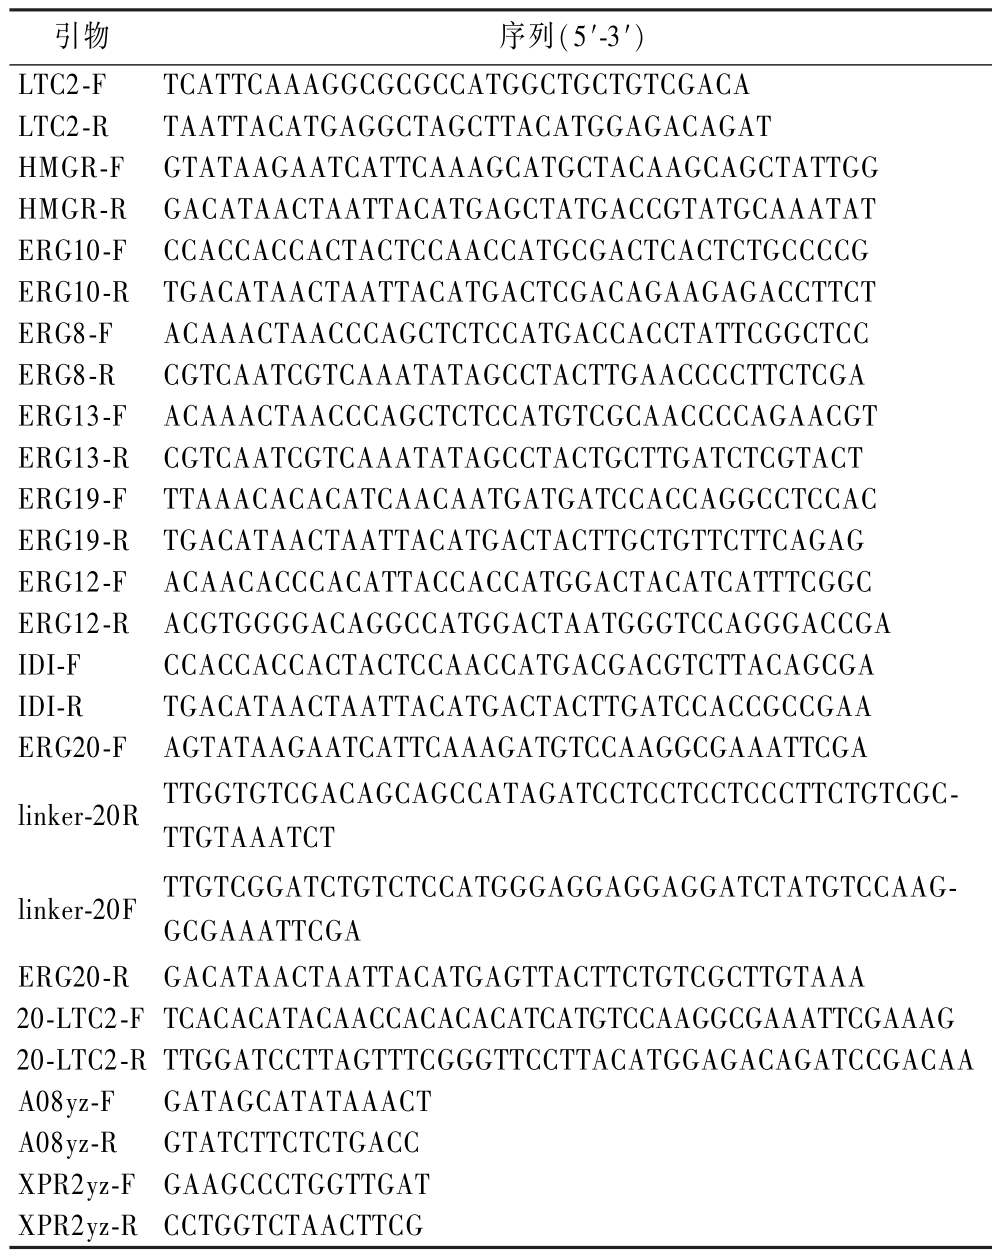
本研究中所使用的Y. lipolytica LE-00、E. coli(JM109)以及部分质粒均由本实验室保存;莴苣来源的吉马烯A 合成酶基因(LTC2)质粒由实验室提供。研究中使用的质粒和菌株如表2 所示,所用引物基于徐龙兴等[15]的研究及表3 所示。
表2 本文涉及的质粒和菌株
Table 2 Plasmids and strains used in this study

质粒和菌株 描述来源84609pCRISPRyl with XPR2 targeting sgRNA实验室保存84610pCRISPRyl with A08 targeting sgRNA实验室保存84611pCRISPRyl with AXP targeting sgRNA实验室保存84614HR donor to integrate PUAS1B8TEF (136)-hrGFP-TCYC1 into XPR2 locus实验室保存84615HR donor to integrate PUAS1B8TEF (136)-hrGFP-TCYC1 into A08 locus实验室保存84616HR donor to integrate PUAS1B8TEF (136)-hrGFP-TCYC1 into AXP locus实验室保存84614-LTC2HR donor to integrate PUAS1B8TEF (136)-LTC2-TCYC1 into XPR2 locus实验室保存84615-HMGRHR donor to integrate PUAS1B8TEF (136)-HMGR-TCYC1 into XPR2 locus实验室保存84616-ERG20HR donor to integrate PUAS1B8TEF (136)-ERG20-TCYC1 into XPR2 locus实验室保存84614-ERG20LLTC2HR donor to integrate PUAS1B8TEF (136)-ERG20LLTC2-TCYC1 into XPR2 locus本研究84614-ERG20LLTC2HR donor to integrate PUAS1B8TEF (136)-LTC2LERG20-TCYC1 into XPR2 locus本研究T1-ERG10-ERG8Ylt1::PTMA-ERG10-TCYC1, PFBA-ERG8-TPEX20t, HisG-Ura3-HisG本研究T2-ERG13-ERG19Ylt2::PFBA-ERG13-TPEX20t, PGPD-ERG19-TCYC1, HisG-Ura3-HisG本研究T3-ERG12-IDIYlt3::PACBP-ERG12-TXPR2, PTMAL-IDI-TCYC1, HisG-Ura3-HisG本研究1312-ERG20LLTC2Php4 d-ERG20LLTC2-TXPR2, Ura3本研究1269-ERG20LLTC2Php4 d-ERG20LLTC2-TXPR2, Leu2本研究LE-00ATCCMYA-2613, MATa, leu2-270, ura3-302, xpr2-322, axp-2, (leu2, ura3)实验室保存LE-01LE-00, ΔXPR2::PUAS1B8TEF (136)-LTC2-TCYC1本研究LE-02LE-00, ΔAXP::PUAS1B8TEF (136)-ERG20-TCYC1本研究LE-03LE-00, ΔXPR2::PUAS1B8TEF (136)-ERG20LLTC2-TCYC1本研究LE-04LE-00, ΔXPR2::PUAS1B8TEF (136)-LTC2LERG20-TCYC1本研究LE-05LE-03, ΔA08::PUAS1B8TEF (136)-HMGR-TCYC1本研究LE-06LE-01, Ylt1::PTMA-ERG10-TCYC1, PFBA-ERG8-TPEX20t本研究LE-07LE-02, Ylt2::PFBA-ERG13-TPEX20t, PGPD-ERG19-TCYC1本研究LE-08LE-03, Ylt3::PACBP-ERG12-TXPR2, PTMAL-IDI-TCYC1本研究LE-09LE-04, Php4 d-ERG20LLTC2-TXPR2, Ura3本研究LE-10LE-05, Php4 d-ERG20LLTC2-TXPR2, Leu2本研究
表3 本文涉及的引物序列
Table 3 Primer sequences used in this study
引物序列(5′-3′)LTC2-FTCATTCAAAGGCGCGCCATGGCTGCTGTCGACA LTC2-RTAATTACATGAGGCTAGCTTACATGGAGACAGAT HMGR-F GTATAAGAATCATTCAAAGCATGCTACAAGCAGCTATTGG HMGR-R GACATAACTAATTACATGAGCTATGACCGTATGCAAATAT ERG10-F CCACCACCACTACTCCAACCATGCGACTCACTCTGCCCCG ERG10-R TGACATAACTAATTACATGACTCGACAGAAGAGACCTTCT ERG8-FACAAACTAACCCAGCTCTCCATGACCACCTATTCGGCTCC ERG8-RCGTCAATCGTCAAATATAGCCTACTTGAACCCCTTCTCGA ERG13-F ACAAACTAACCCAGCTCTCCATGTCGCAACCCCAGAACGT ERG13-R CGTCAATCGTCAAATATAGCCTACTGCTTGATCTCGTACT ERG19-F TTAAACACACATCAACAATGATGATCCACCAGGCCTCCAC ERG19-R TGACATAACTAATTACATGACTACTTGCTGTTCTTCAGAG ERG12-F ACAACACCCACATTACCACCATGGACTACATCATTTCGGC ERG12-R ACGTGGGGACAGGCCATGGACTAATGGGTCCAGGGACCGA IDI-FCCACCACCACTACTCCAACCATGACGACGTCTTACAGCGA IDI-RTGACATAACTAATTACATGACTACTTGATCCACCGCCGAA ERG20-F AGTATAAGAATCATTCAAAGATGTCCAAGGCGAAATTCGA linker-20R TTGGTGTCGACAGCAGCCATAGATCCTCCTCCTCCCTTCTGTCGCTTGTAAATCT linker-20F TTGTCGGATCTGTCTCCATGGGAGGAGGAGGATCTATGTCCAAGGCGAAATTCGA ERG20-R GACATAACTAATTACATGAGTTACTTCTGTCGCTTGTAAA 20-LTC2-F TCACACATACAACCACACACATCATGTCCAAGGCGAAATTCGAAAG 20-LTC2-R TTGGATCCTTAGTTTCGGGTTCCTTACATGGAGACAGATCCGACAA A08yz-FGATAGCATATAAACT A08yz-RGTATCTTCTCTGACC XPR2yz-F GAAGCCCTGGTTGAT XPR2yz-R CCTGGTCTAACTTCG
1.1.2 培养基配方
LB 培养基(g/L):蛋白胨10、酵母提取物5、氯化钠5。 若实验需要,可加入氨苄青霉素或卡那霉素至终质量浓度为100 μg/mL 或50 μg/mL。
YPD 摇瓶发酵培养基(g/L):蛋白胨20、酵母提取物10、葡萄糖20、木糖20。
YPD-5-FOA(5-氟乳清酸,5-fluoroorotic acid)发酵培养基(g/L):蛋白胨20、酵母提取物10,超纯水定容至900 mL。 冷却后添加100 mL 200 g/L 葡萄糖以及五氟乳清酸。
YNB(yeast nitrogen base)培养基(g/L):无氨基酸酵母氮源6.7,超纯水定容至900 mL,灭菌冷却后加入100 mL 已灭菌的200 g/L 葡萄糖溶液。 根据需要补充亮氨酸与尿嘧啶,使二者的终质量浓度均达到100 mg/L。
所有培养基若需制备固体平板,则加入质量浓度20 g/L 琼脂粉。 培养基均于121 ℃条件下灭菌20 min;葡萄糖溶液灭菌条件为115 ℃、20 min;抗生素溶液使用0.22 μm 水相滤膜过滤除菌。
1.1.3 主要试剂
限制性内切酶,美国Thermo Fisher Scientific 公司;Phanta Super-Fidelity DNA Polymerase、2 × Taq Master Mix(Dye Plus)聚合酶、ClonExpressⅡOne Step Cloning Kit,南京诺唯赞生物科技有限公司;胰蛋白胨、酵母提取物、琼脂粉,上海Biosharp 科技有限公司;无氨基酸酵母氮源(YNB),青岛海博生物技术有限公司;氨苄青霉素与卡那霉素,上海生工生物工程股份有限公司;十二烷,上海阿拉丁生化科技股份有限公司;Frozen-EZ Yeast Transformation Ⅱ Kit,美国ZYMO RESEARCH 公司;酵母基因组DNA 提取试剂盒,北京索莱宝科技有限公司;质粒提取试剂盒,北京金沙生物科技有限公司;胶回收试剂盒,上海迈跟生物科技有限公司;常规化学试剂,上海麦克林生化科技股份有限公司。
1.2 仪器与设备
Centrifuge 5810 R 高速冷冻离心机,德国Eppendorf 公司;DK-S12 电热恒温水浴锅,上海森信实验仪器有限公司;DRP-9082 电热恒温培养箱,上海森信实验仪器有限公司;ZWY-211B 恒温培养振荡器,上海智城分析仪器制造有限公司; Agilent 7890B-7000D 气相色谱-质谱联用仪,安捷伦科技有限公司。
1.3 实验方法
1.3.1 质粒与菌株的构建
首先,以PUC57-LTC2 为模板扩增LTC2 基因,并将其克隆至经BssH Ⅱ/Nhe Ⅰ双酶切的84614 载体中,获得质粒84614-LTC2。 随后,以酵母基因组为模板扩增ERG20 基因,通过单酶切连接的方式插入84614-LTC2 载体,从而构建出2 种不同排列顺序的融合质粒:84614-LTC2LERG20 和84614-ERG20LLTC2。最后,将ERG20LLTC2 这一融合基因模块从84614-ERG20LLTC2 质粒上扩增出来,并分别克隆至经pmlⅠ酶切的1312 和1269 载体骨架中,得到最终表达质粒1312-ERG20LLTC2 和1269-ERG20LLTC2[15]。
以酵母基因组为模板,分别扩增了 HMGR、ERG12、ERG8、ERG13、ERG19、ERG10 及IDI 基因。这些基因被模块化地组装到不同载体中:
HMGR 基因被克隆至经BssH Ⅱ/Nhe Ⅰ处理的84615 载体,得到84615-HMGR。
在T1 载体中,依次克隆ERG10(EcoRⅠ位点)和ERG8(SpeⅠ位点),构建T1-ERG10-ERG8。
在T2 载体中,依次克隆ERG13(EcoRⅠ位点)和ERG19(AvrⅡ位点),构建T2-ERG13-ERG19。
在T3 载体中,依次克隆ERG12(SpeⅠ位点)和IDI(NotⅠ位点),构建T3-ERG12-IDI[15]。
为验证ERG20LLTC2 与HMGR 基因在Y.lipolytica基因组中的整合效率,首先利用CRISPR/Cas9 技术,将上述2 个基因分别靶向整合至酵母基因组的XPR2位点与A08 位点。 随后,设计靶向同源臂序列的特异性引物(XPR2yz-F/R 与A08yz-F/R),通过PCR 反应对酵母基因组进行初步验证,PCR 产物经测序分析以确证基因整合正确性。 待单菌落酵母的基因组验证结果为阳性后,将其接种至YNB 液体培养基中培养,待菌体达到适宜密度后,取菌液涂布于YPD-5-FOA 平板,通过该平板筛选去除Ura 筛选标记。
基于Zeta 位点的整合策略,将营养标记基因与ERG20LLTC2 表达单元共同整合至酵母基因组特定位点[30]。 具体操作如下,采用ApaⅠ酶切质粒1269-ERG20LLTC2 使其线性化,回收含目的基因的表达盒片段,进行酵母转化后涂布于YNB 平板,经筛选获得重组菌株LE-10。 随后,从转化平板上随机选取30个单克隆,通过摇瓶发酵实验测定其β-榄香烯产量,最终选取产量最优菌株作为后续研究的初始菌株。
1.3.2 Y.lipolytica 转化
将Y.lipolytica 种子液接种于10 mL YPD 液体培养基中,于30 ℃条件下培养20 ~24 h。 取0.5 ~1.0 mL转接至50 mL YPD 液体培养基中,继续培养至OD600nm值为0.6 ~0.8。 取1 mL 菌液置于1.5 mL EP管中,5 000 r/min 离心4 min 后弃去上清液。 使用Frozen-EZ Yeast Transformation ⅡKit 试剂盒进行酵母转化[15]。 转化结束后,在超净台中将全部菌液涂布于YNB 平板或根据实验需求添加亮氨酸、尿嘧啶的筛选平板上。 待菌液被平板吸收后,倒置平板于30 ℃培养箱中培养2 ~3 d。
1.3.3 培养方法
E.coli 培养:自甘油保菌管中取菌,于含相应抗生素的LB 固体培养基上划线活化,37 ℃培养12 h。 挑取单菌落接种至含10 mL LB 液体培养基(含相应抗生素)的试管中,在37 ℃、220 r/min 条件下振荡培养12 h。
酵母种子液制备:从甘油保菌管中取酵母菌,于YPD 固体培养基上划线,30 ℃培养72 h。 选取单菌落转接至10 mL YPD 液体培养基中,在30 ℃、220 r/min条件下培养24 h。
摇瓶发酵过程:将上述种子液按初始OD600nm值=0.1 接种至含50 mL YPD 培养基的摇瓶中,并加入体积分数4%的十二烷作为萃取相,开始发酵。 发酵在30 ℃、220 r/min 的振荡条件下持续进行72 h。每组做3 个平行并进行重复实验。
1.3.4 培养基优化实验设计
为优化β-榄香烯产量,首先通过单因素试验筛选关键培养基组分及其适宜浓度范围。 在此基础上,运用Box-Behnken 响应面法对筛选出的组分进行深入分析与优化组合。 实验设计借助Design Expert 8.0.6软件完成。
1.3.4.1 单因素试验设计
以YPD 培养基为基准,在控制其他条件恒定的前提下,系统改变单一变量进行发酵培养:
不同碳源的筛选(20 g/L):葡萄糖、木糖、葡萄糖+木糖。
木糖质量浓度:20、40、60、80、100 g/L;蛋白胨质量浓度:10、20、30、40、50 g/L;酵母提取物质量浓度:5、10、15、20、25 g/L;种子液接种量(以初始OD600nm值计):0.01、0.05、0.1、0.5、1。
发酵容器的筛选:普通锥形瓶,挡板锥形瓶。
通过比较不同变量水平下β-榄香烯的产量,评估各培养基成分及接种量对产物合成的影响。
1.3.4.2 Box-Behnken 响应面法
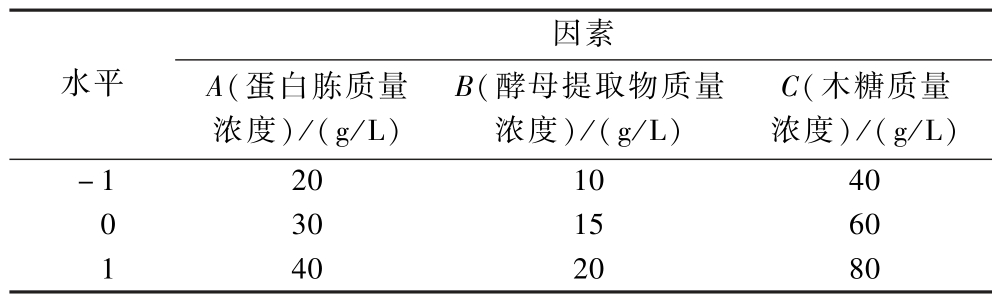
基于单因素试验结果,选择β-榄香烯产量作为优化目标(响应值),采用Box-Behnken 中心组合设计(Box-Behnken central composite design, BBD)方法对关键培养基组分进行响应面优化。 通过构建数学模型并分析模型拟合度,旨在确定发酵培养基的最佳配方组成,从而最大化β-榄香烯的合成产量。 具体的实验设计方案详见表4。
表4 响应面法实验设计
Table 4 Design of response surface methodology
水平因素A(蛋白胨质量浓度)/(g/L)B(酵母提取物质量浓度)/(g/L)C(木糖质量浓度)/(g/L)-1201040 301560 1 402080 0
1.4 数据处理与统计分析方法
所有实验数据均基于至少3 次独立重复实验的结果计算平均值。 数据处理及统计分析分别使用Excel 2021 和Design Expert 8.0.6 软件完成。 针对单因素试验获得的数据,采用单因素方差分析(one-way ANOVA)评估组间差异的统计学显著性,并进一步运用Dunnett’s 多重比较检验进行组间两两比较。 以P <0.05 作为判断差异具有统计学意义的标准。
2 结果与分析
2.1 木糖源养型Y. lipolytica 合成β-榄香烯的工程菌株构建
为了实现木糖到β-榄香烯的转化,本研究首先采用CRISPR/Cas9 基因编辑技术在出发菌株LE-00的XPR2 位点整合莴苣来源的GAS LTC2,获得菌株LE-01。 将所得工程菌株在50 mL YPX 培养基中发酵72 h。 发酵结束后收集β-榄香烯进行GC-MS 分析,结果表明菌株LE-01 成功实现了β-榄香烯合成,产量为(7.23 ±0.21) mg/L(图2),表明β-榄香烯合成模块的成功构建。
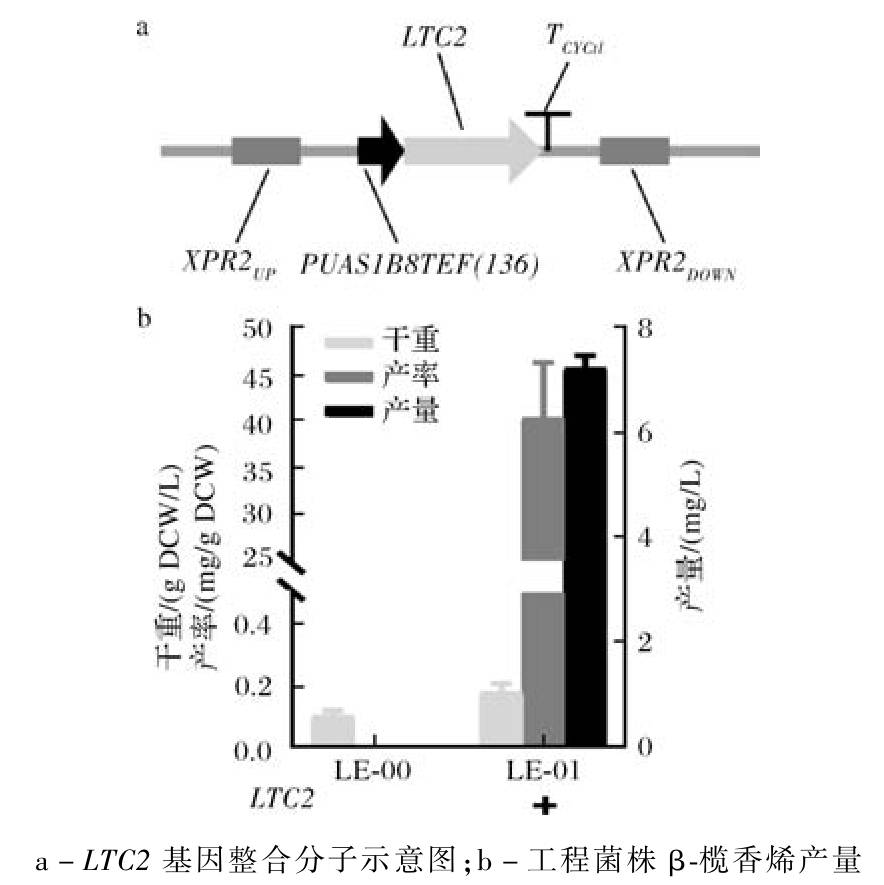
图2 β-榄香烯初步合成
Fig.2 Preliminary synthesis of β-elemene
注:+代表对应基因整合到菌株中;细胞干重(dry cell weight,DCW)(下同)。
2.2 融合蛋白构建,提高β-榄香烯合成效率
β-榄香烯合成前体物质FPP,同时为细胞生长必需物质角鲨烯合成的前体物质,这使得β-榄香烯合成存在前体竞争。 在MVA 途径中,FPP 由法尼基焦磷酸合成酶ERG20 催化合成。 通过柔性Linker 将前体合成酶与产物合成酶融合,构建融合蛋白,能够有效地缩短2 个酶的空间距离,提高底物的获取效率,实现目标产物的高效合成[18]。 值得注意的是,融合蛋白的构建顺序影响产物合成效率[15]。 本研究基于LTC2 和ERG20,采用柔性Linker,GGGGS,构建2 种不同融合蛋白,LTC2LERG20 和ERG20LLTC2。 采用CRISPR/Cas9 基因编辑技术整合表达上述2 种蛋白,得到菌株LE-03 和LE-04。 同时,在LE-01 中整合表达ERG20,得到对照菌株LE-02。 将所得工程菌株在50 mLYPX 培养基中发酵72 h。 发酵结束后收集β-榄香烯进行GC-MS 分析,结果表明表达融合蛋白ERG20LLTC2 的菌株LE-04 成功实现了(67. 84 ±6.25) mg/L β-榄香烯合成,为对照菌株LE-02 的1.99 倍;菌株LE-03 的产量与LE-01 类似,低于LE-02(图3)。 上述结果表明,ERG20LLTC2 为融合蛋白构建的最优方式,反之不能促进底物的传递,且N 端的LTC2 可能会阻止IPP 和DMAPP 进入ERG20 蛋白的催化中心,使融合蛋白中ERG20 的蛋白功能受限。
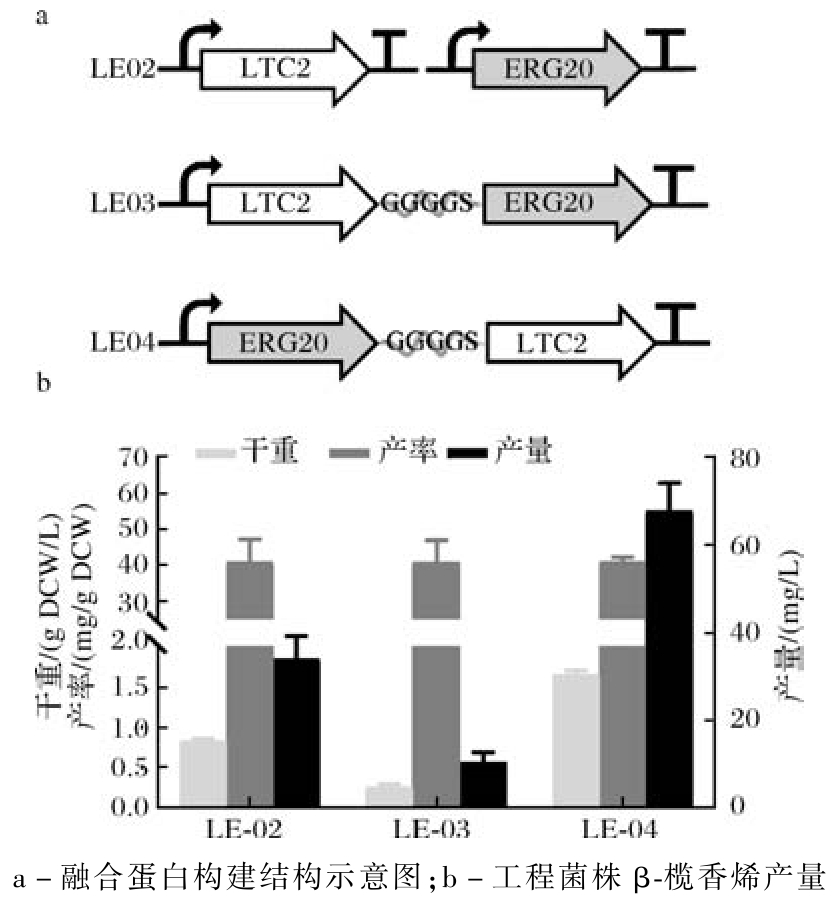
图3 构建融合蛋白,提高β-榄香烯合成效率
Fig.3 Construction of fusion protein to improve the synthesis efficiency of β-elemene
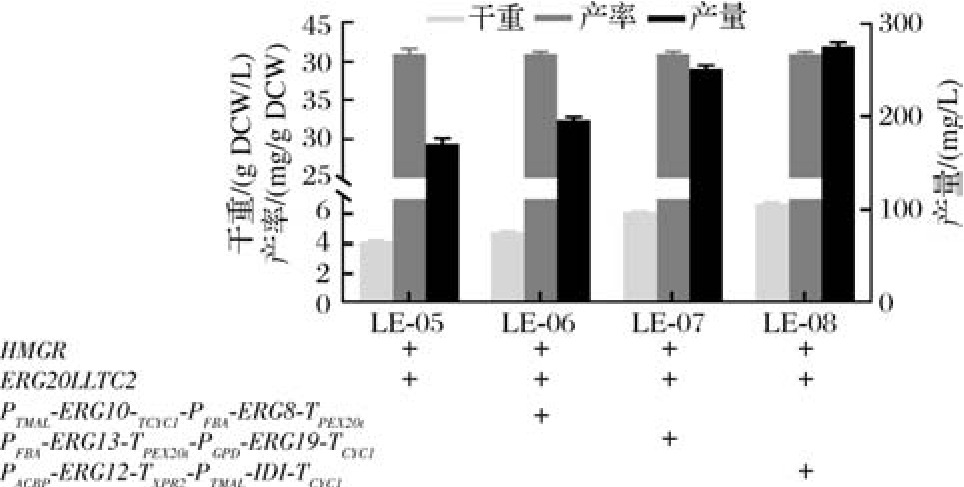
图4 过表达MVA 途径关键基因以提高β-榄香烯合成效率
Fig.4 Overexpression of key genes in the MVA pathway to improve the synthesis efficiency of β-elemene
2.3 MVA 途径强化,促进木糖到β-榄香烯的转化
作为次级代谢途径的MVA 途径在Y. lipolytica体内受到严格调控[18],其代谢流因此受限。 为了实现代谢流从碳源到萜类的高效流动,MVA 途径基因的过表达成为一种有效的改造方式[29]。 本研究基于LE-04,采用CRISPR/Cas9 基因编辑技术在A08 位点过表达MVA 途径关键限速酶3-羟基-3-甲基戊二酰辅酶A 还原酶(3-hydroxy-3-methylglutaryl-CoA reductase, HMGR)[18],得到工程菌株LE-05。 经与前文相同的发酵过程后,对产物进行分析。 结果表明,菌株LE-05 相较于对照菌株LE-04,β-榄香烯产量提高2.51倍,达(170.15 ±5.81) mg/L。 在此基础上,进一步在Y.lipolytica 多拷贝位点Ylt1、Ylt2、Ylt3 依次过表达 PTMAL-ERG10-TCYC1-PFBA-ERG8-TPEX20t、 PFBA-ERG13-TPEX20t-PGPD-ERG19-TCYC1、 PACBP-ERG12-TXPR2-PTMAL-IDITCYC1,获得菌株LE-06、LE-07、LE-08。 发酵结果表明,随着MVA 途径基因的过表达,β-榄香烯产量进一步提高,菌株LE-08 产量达(274.63 ±4.2) mg/L。 上述结果表明,MVA 途径基因的过表达能够有效解除胞内代谢网络对MVA 途径的调控,提高β-榄香烯的产量。 为实现β-榄香烯产量的突破性提升,后续研究将聚焦发酵培养基的系统优化。
2.4 增加融合蛋白拷贝数,实现木糖到β-榄香烯的高效转化
基于筛选得到的融合蛋白ERG20LLTC2,进一步在回补筛选标记的同时提高融合蛋白的拷贝数,得到工程菌株LE-09 和LE-10。 发酵结果表明,随着MVA途径基因的过表达,β-榄香烯产量进一步提高,菌株LE-10 产量达(413.28 ±49) mg/L。 上述结果表明,融合蛋白的过表达能进一步提高β-榄香烯的产量(图5)。 上述结果表明,融合蛋白的过表达能进一步提高β-榄香烯的产量。
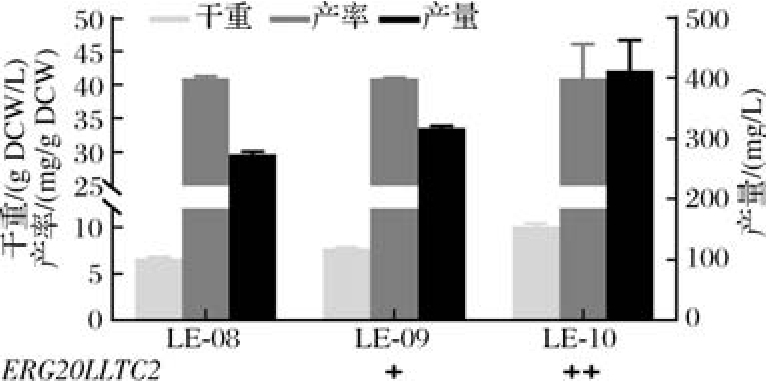
图5 增加融合蛋白ERG20LLTC2 拷贝数以提高β-榄香烯合成效率
Fig.5 Increasing the copy number of fusion protein ERG20LLTC2 to enhance β-elemene synthesis efficiency
注:“ +”数目表示拷贝数。
2.5 发酵工艺优化单因素试验
2.5.1 不同碳源、氮源、接种量以及发酵容器对β-榄香烯产量的影响
本实验优化了菌株LE-10 生产β-榄香烯的条件。 首先探究3 种发酵碳源对β-榄香烯生产的影响。 由图6-a 可知,在所选取的3 种碳源组成方式中(碳源所用质量浓度均为20 g/L),菌株LE-10 以葡萄糖为底物时,β-榄香烯产量最高;以木糖为单一碳源时,β-榄香烯产量为(413. 28 ±49) mg/L,表明工程菌株能够利用木糖合成β-榄香烯。 同时为探究不同氮源对于β-榄香烯生产的影响,选取蛋白胨、酵母提取物、氯化铵、硫酸铵4 种常见氮源,对菌株LE-10进行摇瓶水平的发酵实验。 由图6-c 可知,其中以酵母提取物作为氮源的培养条件下,菌株的β-榄香烯产量最高,达到了(379.97 ±54.07) mg/L,而无机氮源效果较差。 菌株LE-10 在不同接种量下β-榄香烯产量结果如图6-f 所示,随着接种量的增加,β-榄香烯产量呈现先上升再下降最后有上升的趋势,但接种量OD600nm值为1 时所获得的β-榄香烯产量仍低于接种量为0.1 时的产量。 接种量为0.1 时,β-榄香烯的产量达到了(434.20 ±44.46) mg/L。 并且通过使用挡板锥形瓶与普通的锥形瓶同时发酵菌株LE-10。如图6-g 所示,使用挡板锥形瓶发酵产生β-榄香烯的产量明显高于普通锥形瓶,挡板锥形瓶中的β-榄香烯产量可达到(666.72 ±23.34) mg/L,远高于普通锥形瓶中的β-榄香烯产量。

图6 培养基中不同因素对β-榄香烯产量的影响
Fig.6 Effect of different factors in the culture medium on β-elemene production
2.5.2 木糖、蛋白胨、酵母提取物质量浓度对β-榄香烯产量的影响
由图6-b 可知,随着木糖质量浓度的增加,β-榄香烯的产量呈现先上升后下降的趋势,当木糖质量浓度为40 g/L,β-榄香烯产量最高,即(485.80 ±43.41) mg/L。基于氮源单因素分析结果,本研究对YPD 中蛋白胨质量浓度(10 ~50 g/L)进行了进一步系统优化。 结果表明(图6-d),β-榄香烯产量随蛋白胨质量浓度增加呈正态变化。 当蛋白胨质量浓度为30 g/L 时,产量达到最高值(398.34 ±26.84) mg/L。 过高或过低的蛋白胨浓度均不利于产物积累,这可能与氮源代谢调控机制有关。 同时本研究对YPD 中酵母提取物质量浓度(5 ~25 g/L)也进行了进一步系统优化。 如图6-e 所示,β-榄香烯产量随酵母提取物质量浓度增加呈先升后降趋势。 当酵母提取物质量浓度为15 g/L时,产量达到峰值(418. 55 ±30. 33) mg/L。 质量浓度过高可能导致营养过剩或代谢抑制,而质量浓度过低则限制菌体生长。
2.6 Box-Behnken 响应面实验
2.6.1 Box-Behnken 优化设计结果
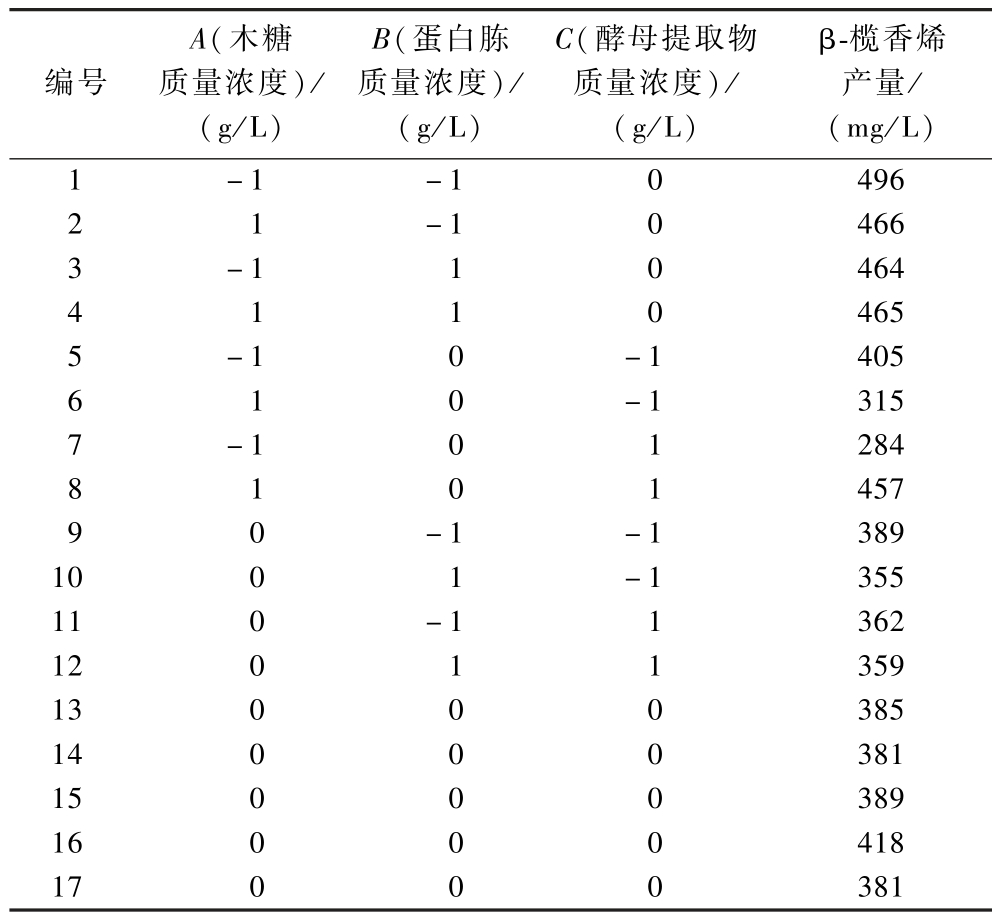
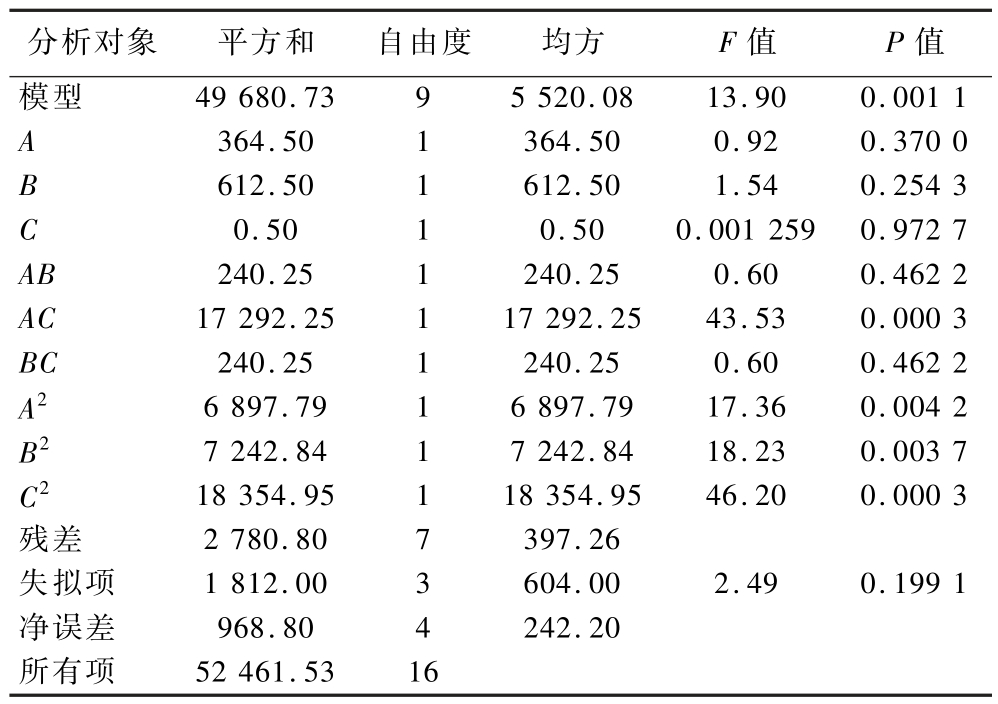
基于前期单因素试验筛选出3 个显著影响β-榄香烯产量的因子(木糖质量浓度、蛋白胨质量浓度、酵母提取物质量浓度),在固定发酵时间为72 h 的条件下,采用响应面法以β-榄香烯产量为响应值进行发酵条件优化。 实验结果如表5 所示。 实验数据经Design Expert 8.0.6 软件分析,得到二次多元回归方程:R1 =390.80 +6.70A -8.75B -0.25C +7.75AB +65.75AC + 7. 75BC + 40. 47A2 + 41. 47B2 - 66. 02C2(R1,β-榄香烯产量,mg/L;A,木糖质量浓度,g/L;B,蛋白胨质量浓度,g/L;C,酵母提取物质量浓度,g/L)。
表5 Box-Behnken 实验设计和结果
Table 4 Box-Behnken experimental design and results
编号A(木糖质量浓度)/(g/L)B(蛋白胨质量浓度)/(g/L)C(酵母提取物质量浓度)/(g/L)β-榄香烯产量/(mg/L)1-1-10496-10466 3-110464 4 1 1 0 465 2 1-10-1405 6 1 0-1315 5-101284 8 1 0 1 457 7-1-1389 1001-1355 110-11362 12011359 13000385 14000381 15000389 16000418 17000381 9 0
根据模型方差分析结果(表6),模型决定系数R2 =0.947 7,校正系数R2Adj =0.878 8,说明该模型能解释94.77%的数据变异,剔除自变量个数对R2 的影响后系数为0.878 8,该模型拟合度良好。 模型概率值为0.001 1,失拟项P =0.199 1 >0.05,说明回归模型显著,可以用于预测β-榄香烯的最大产量。 交互作用分析显示,交互项AC 的P 值为0.000 3( <0.05),显著。 而交互项AB 和BC 的P 值为0.462 2,不显著。
表6 Box-Behnken 实验方差分析
Table 5 Box-Behnken experimental analysis of variance (ANOVA)
分析对象平方和自由度均方F 值P 值模型49 680.7395 520.0813.900.001 1 364.501364.500.920.370 0 B 612.501612.501.540.254 3 C 0.5010.500.001 259 0.972 7 AB240.251240.250.600.462 2 AC17 292.25117 292.2543.530.000 3 BC240.251240.250.600.462 2 A26 897.7916 897.7917.360.004 2 B27 242.8417 242.8418.230.003 7 C218 354.95118 354.9546.200.000 3残差2 780.807397.26失拟项1 812.003604.002.490.199 1净误差968.804242.20所有项52 461.5316 A
利用Design Expert 8.0.6 对回归方程中的交互项绘制响应面分析图如图7 所示,图为在酵母提取物质量浓度为15 g/L 的条件下,木糖质量浓度与蛋白胨质量浓度的交互影响(图7-a),可见响应面斜度较陡,等高线呈椭圆形,说明两者之间存在交互作用。在蛋白胨质量浓度为30 g/L,木糖质量浓度与酵母提取物质量浓度的交互影响图(图7-b),可见响应面曲面斜度也表现出明显的陡峭特征,说明交互作用显著。 根据回归方程可预测出最佳理论条件,木糖、酵母提取物、蛋白胨质量浓度分别为80、39.86、17.93 g/L时,β-榄香烯的产量最大为498 mg/L。
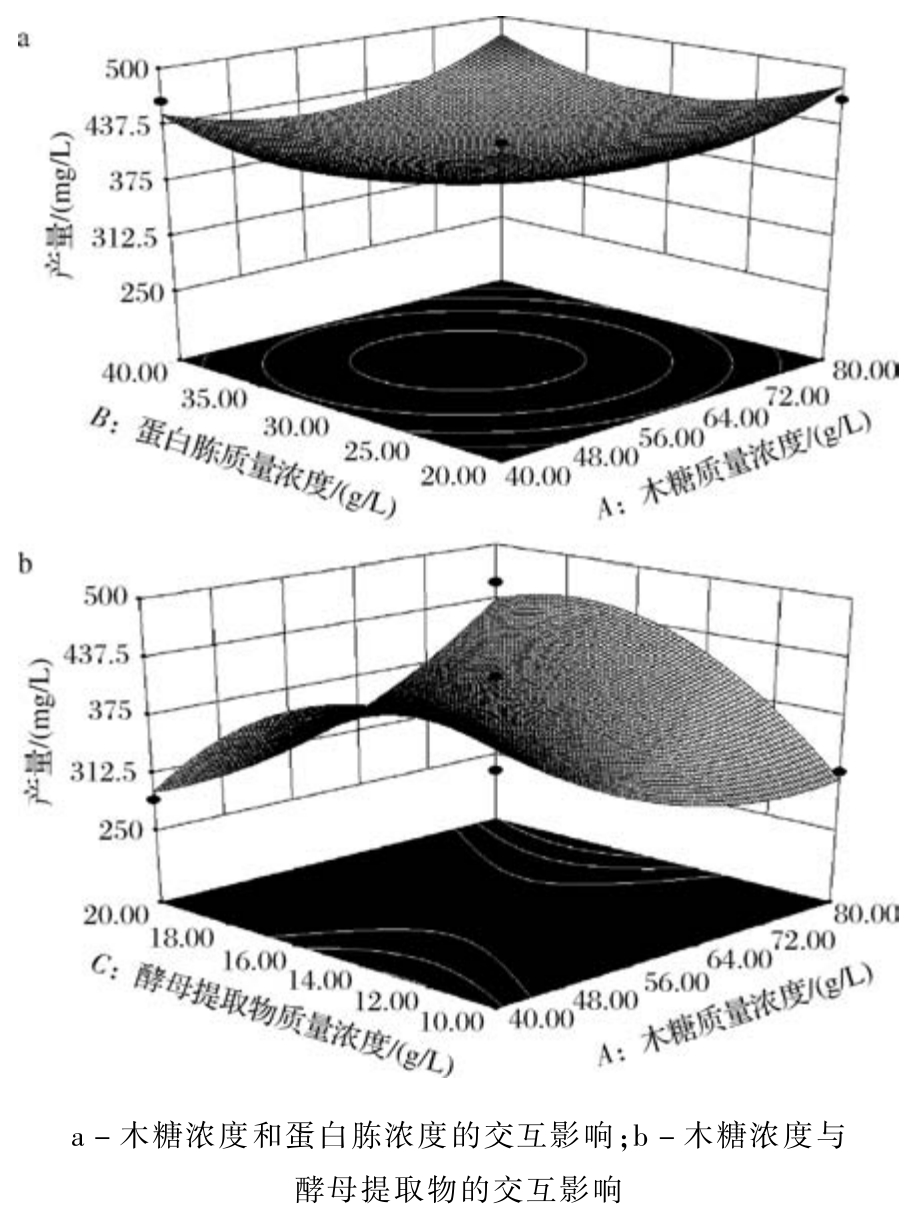
图7 各因素作用对菌株LE-10 生产β-榄香烯的影响
Fig.7 Influence of the action of various factors on elemene production by strain LE-10
2.6.2 最优条件的预测及验证
根据Design Expert 8.0.6 软件得出的回归方程,β-榄香烯的发酵培养基最佳发酵条件为:80 g/L 的木糖、39. 86 g/L 的蛋白胨、17. 93 g/L 的酵母提取物(接种量OD600nm值=0.01)。 在此条件下重复验证实验,β-榄香烯的产量达到了(499 ±1.47) mg/L,与理论值498 mg/L 基本一致,证明该模型能够较好地预测工程菌发酵生产β-榄香烯的产量。 以相同发酵条件,在挡板锥形瓶中发酵,结果如图8 所示,产量达(912.33 ± 70. 93) mg/L,较普通锥形瓶,产量提高83.20%,较初始产量提高120.75%。
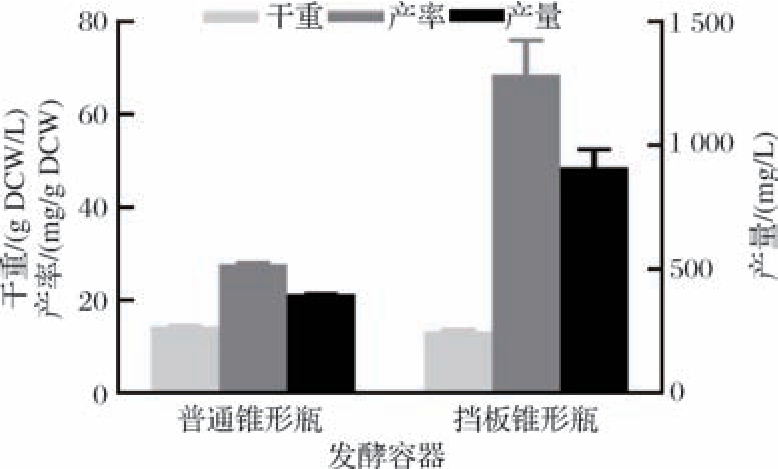
图8 不同的发酵容器对β-榄香烯生产的影响
Fig.8 Effects of different fermentation vessels on production of β-elemene
3 结论
本研究基于LE-00 工程菌株成功构建了利用木糖合成β-榄香烯的工程菌株LE-10。 通过构建融合蛋白ERG20LLTC2 成功提高β-榄香烯的合成效率,并进一步通过强化MVA 途径基因表达、增加融合蛋白拷贝数,成功实现木糖到β-榄香烯的高效转化,产量达(413. 28 ±49) mg/L,为初始菌株LE-01 的56倍。 在此基础上,基于基础培养基,采用单因素试验,筛选出木糖质量浓度和蛋白胨质量浓度、酵母提取物质量浓度这3 个对β-榄香烯产量影响最为显著的因素。 随后,通过Box-Behnken 响应面分析法优化培养基配方,并使用有挡板的锥形瓶进行发酵,最终在摇瓶规模下将目标产物产量提升至(912.33 ±70.93) mg/L,相比于优化前β-榄香烯的产量提高了120.75%。 在后续研发中,将采用发酵罐进行放大培养,并结合实时监测与动态调控策略,以进一步提升β-榄香烯的产量,为该化合物的规模化生产提供可行路径。 该研究为Y.lipolytica 发酵生产β-榄香烯的工业化应用奠定了重要基础。
[1] Gonçalves F A, Colen G, Takahashi J A. Yarrowia lipolytica and its multiple applications in the biotechnological industry[J]. The Scientific World Journal, 2014, 2014:476207.
[2] Gu Y, Xu P. Synthetic yeast brews neuroactive compounds[J].Nature Chemical Biology, 2021, 17(1):8 -9.
[3] Park Y K, Nicaud J M. Metabolic engineering for unusual lipid production in Yarrowia lipolytica [ J]. Microorganisms, 2020, 8(12):1937.
[4] Gao Q, Cao X, Huang Y Y, et al. Overproduction of fatty acid ethyl esters by the oleaginous yeast Yarrowia lipolytica through metabolic engineering and process optimization[J]. ACS Synthetic Biology,2018, 7(5):1371 -1380.
[5] Spagnuolo M, Shabbir Hussain M, Gambill L, et al. Alternative substrate metabolism in Yarrowia lipolytica[J]. Frontiers in Microbiology, 2018, 9:1077.
[6] Zinjarde S S. Food-related applications of Yarrowia lipolytica[J].Food Chemistry, 2014, 152:1 -10.
[7] Cavallo E, Charreau H, Cerrutti P, et al. Yarrowia lipolytica:a model yeast for citric acid production[J]. FEMS Yeast Research,2017, 17(8):fox084.
[8] 王柳欢, 邵语瑶, 崔啸林, 等. 解脂耶氏酵母异源合成倍半萜的研究进展[J]. 生物工程学报, 2025, 41(9):3426 -3447.Wang L H, Shao Y Y, Cui X L, et al. Progress in the heterologous synthesis of sesquiterpenes by Yarrowia lipolytica[J]. Chinese Journal of Biotechnology, 2025, 41(9):3426 -3447.
[9] Liu S C, Xu L X, Sun Y J, et al. Progress in the metabolic engineering of Yarrowia lipolytica for the synthesis of terpenes[J].Biodesign Research, 2024, 6:0051.
[10] 花文峰, 蔡绍晖. β-榄香烯抗肿瘤作用的基础与临床研究[J]. 中药材, 2006,29(1):93 -97.Hua W F, Cai S H. Basic and clinical research on the anti-tumor effect of β-elemene[J]. Journal of Chinese Medicinal Materials,2006, 29(1):93 -97.
[11] Zhao L P, Wang H J, Hu D, et al. β-Elemene induced ferroptosis via TFEB-mediated GPX4 degradation in EGFR wide-type nonsmall cell lung cancer[J]. Journal of Advanced Research, 2024,62:257 -272.
[12] Yang D L, Xu X X, Wang X, et al. Erratum:β-elemene promotes the senescence of glioma cells through regulating YAP-CDK6 signaling[J]. American Journal of Cancer Research, 2024, 14(2):931 -933.
[13] Chen P, Li X J, Zhang R N, et al. Combinative treatment of β-elemene and cetuximab is sensitive to KRAS mutant colorectal cancer cells by inducing ferroptosis and inhibiting epithelial-mesenchymal transformation[J]. Theranostics, 2020, 10(11):5107 -5119.
[14] Ye M, Gao J Q, Zhou Y J. Global metabolic rewiring of the nonconventional yeast Ogataea polymorpha for biosynthesis of the sesquiterpenoid β-elemene[J]. Metabolic Engineering, 2023, 76:225 -231.
[15] 徐龙兴, 孙悦嘉, 张玮辰, 等. 代谢工程改造解脂耶氏酵母合成β-榄香烯及其发酵优化[J]. 食品与发酵工业, 2025, 51(22):198 -204.Xu L X, Sun Y J, Zhang W C, et al. Metabolic engineering and medium optimization for β-elemene production in Yarrowia lipolytica[J]. Food and Fermentation Industries, 2025, 51(22):198 -204.
[16] 徐龙兴, 袁丽杰, 刘顺成. 解脂耶氏酵母合成萜类化合物的研究进展[J]. 微生物学通报, 2024, 51(9):3268 -3302.Xu L X, Yuan L J, Liu S C. Research progress in the synthesis of terpenoids from Yarrowia lipolytica [ J]. Microbiology China,2024, 51(9):3268 -3302.
[17] Liu S C, Xu L X, Sun Y J, et al. Sustainable high-titer production of β-elemene in Yarrowia lipolytica via modular engineering, pathway refactoring, and a chimeric germacrene A synthase[J]. Chemical Engineering Journal, 2026, 528:172276.
[18] Liu Q, Zhang G, Su L Q, et al. Reprogramming the metabolism of oleaginous yeast for sustainably biosynthesizing the anticarcinogen precursor germacrene A[J]. Green Chemistry, 2023, 25(20):7988 -7997.
[19] Dai M Y, Cao Q Y, Jia S L, et al. Engineering Yarrowia lipolytica for high-level β-elemene production via combinatorial metabolic strategies[J]. Synthetic and Systems Biotechnology, 2025, 10(4):1172 -1179.
[20] Vargas B O, dos Santos J R, Pereira G A G, et al. An atlas of rational genetic engineering strategies for improved xylose metabolism in Saccharomyces cerevisiae[J]. PeerJ, 2023, 11:e16340.
[21] Kim S R, Park Y C, Jin Y S, et al. Strain engineering of Saccharomyces cerevisiae for enhanced xylose metabolism[J]. Biotechnology Advances, 2013, 31(6):851 -861.
[22] Fordjour E, Chun-li L, Yunpeng H, et al. Engineering Escherichia coli BL21 (DE3) for high-yield production of germacrene A,a precursor of β-elemene via combinatorial metabolic engineering strategies[J]. Biotechnology and Bioengineering,2023(10):3039 -3056.
[23] Lu Y H, Zhang X Y, Wang F, et al. Optimization of germacrene a synthase for efficient production of β-elemene in Escherichia coli[J]. ACS Sustainable Chemistry & Engineering, 2024, 12(24):9018 -9026.
[24] Zhang W X, Guo J Q, Wang Z, et al. Improved production of germacrene A, a direct precursor of ß-elemene, in engineered Saccharomyces cerevisiae by expressing a cyanobacterial germacrene A synthase[J]. Microbial Cell Factories, 2021, 20(1):7.
[25] Hu Y H, Zhang Q, Bai X, et al. Screening and modification of( +)-germacrene A synthase for the production of the anti-tumor drug ( - )-β-elemene in engineered Saccharomyces cerevisiae[J].International Journal of Biological Macromolecules, 2024, 279(Pt 4):135455.
[26] Cheng J T, Zuo Y M, Liu G F, et al. Development of a Pichia pastoris cell factory for efficient production of germacrene A:a precursor of β-elemene[J]. Bioresources and Bioprocessing, 2023,10(1):38.
[27] Ye M, Gao J Q, Li J J, et al. Promoter engineering enables precise metabolic regulation towards efficient β-elemene production in Ogataea polymorpha[J]. Synthetic and Systems Biotechnology,2024, 9(2):234 -241.
[28] Ye C F, Li M X, Gao J C, et al. Metabolic engineering of Pichia pastoris for overproduction of cis-trans nepetalactol[J]. Metabolic Engineering, 2024, 84:83 -94.
[29] Li W J, Mai J, Lin L, et al. Combination of microbial and chemical synthesis for the sustainable production of β-elemene, a promising plant-extracted anticancer compound[J]. Biotechnology and Bioengineering, 2023, 120(12):3612 -3621.
[30] Liu M S, Wu J J, Yue M Y, et al. YaliCMulti and YaliHMulti:stable, efficient multi-copy integration tools for engineering Yarrowia lipolytica[J]. Metabolic Engineering, 2024, 82:29 -40.