甲壳素是仅次于纤维素的全球第二大丰富的生物聚合物[1],广泛分布于甲壳类动物的外骨骼、藻类、昆虫以及真菌细胞壁中[2]。 其高结晶度的性质导致了强烈的分子间相互作用,使得甲壳素溶解性差,应用受到限制[3]。 甲壳素及其降解产物壳聚糖、壳寡糖在医学、生物学、农业、日化等多个前沿领域展现出巨大的应用潜力和研究价值。 但是不溶性甲壳素往往难以被利用,利用甲壳素降解酶体系将其降解为具有更好性能的产物是目前的研究热点[4]。 然而,传统的甲壳素处理方法存在效率低、环境毒性大以及可控性差等缺点[5]。 相比之下,利用生物催化剂的酶法降解甲壳素在环境友好性和反应精确调控方面展现出显著的优势,酶解法被视为一种理想且环保的甲壳素降解途径[6]。
甲壳素降解需要多种水解酶的参与。 甲壳素酶(EC 3.2.1.14)可分为外切甲壳素酶(EC 3.2.1.29)和内切甲壳素酶(EC 3.2.1.14)[7]。 来自甲壳素降解细菌Chitiniphilus shinanonensis SAY3T[8-9]——一种属于 GH18 家族的细菌——编码了甲壳素酶CSChiG(一种多催化结构域的内切甲壳素酶)[10]、CSChiL(一种内切甲壳素酶)[11]以及CSChiO(一种外切甲壳素酶)[12],这些酶均具有良好的胶体甲壳素降解活性。 甲壳素脱乙酰酶(EC 3.5. 1. 41CDA)通过去除N-乙酰氨基葡萄糖残基上的乙酰基,催化甲壳素转化为壳聚糖。 来源于构巢曲霉(Aspergillus nidulans) FGSC A4 的甲壳素脱乙酰酶AnCDA[13],其降解模式已被充分研究,且研究表明其对多种底物具有广泛的脱乙酰活性。
目前,在发掘新型甲壳素酶和甲壳素脱乙酰酶方面已取得显著进展,但对于它们构成的协同降解体系的研究仍然有限且不够全面。 Qing 等[14]通过表面展示技术构建了共表达甲壳素脱乙酰酶ArCDA 和甲壳素酶SaChiB 的工程菌,在10 小时内产生了(294.30 ±16.43) mg/L 的N 乙酰甲壳二糖(GlcNAc)2,最高脱乙酰活性达到76.46 U/mg,但该研究缺乏对底物结构变化的深入探讨。 酶法降解效率取决于2 个关键因素:一是由底物结晶度决定的酶可及性[通过3,5-二硝基水杨酸(3,5-dinitrosalicylic acid,DNS)法测定β-1,4-糖苷键断裂释放的还原糖来反映],二是甲壳素脱乙酰酶对乙酰基的去除[傅立叶红外光谱(Fourier transform infrared spectroscopy,FT-IR) 中1 320/1 420 cm-1的酰胺峰变化],后者会改变底物的电荷性质[15]。 X 射线衍射(X-ray diffraction,XRD)分析表明,酶的协同作用能破坏甲壳素的氢键网络,降低其结晶度,从而暴露更多的酶切位点[16]。
目前,关于甲壳素酶与甲壳素脱乙酰酶协同增强甲壳素降解的研究较少。 本研究聚焦于从特定菌株中筛选出的3 种甲壳素酶(CSChiG、CSChiL 和CSChiO),探究它们与甲壳素脱乙酰酶AnCDA 之间的协同作用。 通过系统性实验,筛选出有效的甲壳素降解酶组合,并优化关键工艺参数(温度、pH、酶配比)。采用高效液相色谱(high performance liquid chromatography,HPLC)和基质辅助激光解吸电离飞行时间质谱(matrix-assisted laser desorption/ionization time of flight mass spectrometry,MALDI-TOF-MS)分析水解产物,并利用FT-IR 和XRD 表征底物结构的变化,从而证实协同效应。 本研究旨在为甲壳素的双酶协同降解及其潜在的高值化应用提供理论依据。
1 材料与方法
1.1 材料与试剂
质粒pET-22b( + )、大肠杆菌(Escherichia coli)DH5α 与BL21(DE3)为本实验室保存。 限制性内切酶、DNA 连接酶等购自TaKaRa 公司。
胰蛋白胨、酵母粉,赛默飞世尔科技公司;氯化钠、酒石酸钾钠、苯酚、无水硫酸钠、十二水和磷酸氢二钠、二水合磷酸氢二钠等,国药集团化学试剂有限公司;甲壳素粉末,上海麦克林生化科技股份有限公司;氨苄青霉素钠、质粒抽提试剂盒、PCR 产物纯化试剂盒、Braford 蛋白浓度测定试剂盒,生工生物工程上海(股份)有限公司;IPTG,上海阿拉丁生化科技股份有限公司;14-乙酰氨基葡萄糖(N-acetylglucosamine,GlcNAc),武汉市华顺生物技术有限公司;甲壳寡糖(GlcNAc)2-6,青岛河海生物科技有限公司。
1.2 仪器与设备
Veriti9902 梯度PCR 仪,Applied Biosystens 公司;核酸电泳仪,北京市六一仪器厂;GBoxF3 凝胶成像系统,美国SYNGENE 公司;NGCTM3rd Story Expansion Frame 蛋白纯化仪,美国Bio-RAD Laboratories 公司;K10219D 酶标仪,美国Bio Tek Instruments 有限公司;高效液相色谱分析仪,悟空科学仪器(上海)有限公司;SmartLab-3kW 型X 射线衍射仪,日本Rigaku 公司;Shodex Asahipak NH2P-50 4E 色谱柱(粒径5 μm,4.6 mm ×250 mm),美国Showa Denko 公司。
1.3 实验方法
1.3.1 胶体甲壳素制备
将10 g 甲壳素与100 mL 浓盐酸混合,剧烈搅拌后静置1 h,转入400 mL 50%(体积分数)乙醇溶液中并搅拌过夜。 7 654 ×g 离心20 min,收集沉淀并用超纯水洗涤至中性,冷冻干燥后备用[17]。
1.3.2 菌株构建与表达
根据GenBank 序列,甲壳素酶基因CSChiG(Gene-Bank ID:BAK53891.1)、CSChiL(WP_018749627.1)和CSChiO(WP_018748193. 1)经密码子优化后由生工生物工程上海有限公司完成全基因合成。 通过5′BamH Ⅰ和3′Xho Ⅰ双酶切位点将目的基因克隆至大肠杆菌表达载体pET22b( +),构建重组质粒并转化至大肠杆菌BL21(DE3)。 取活化后的单菌落接种至含氨苄青霉素的LB 培养基,加入IPTG 诱导蛋白表达。 收集菌体并用磷酸钠缓冲液重悬,超声破碎后取上清液,采用Ni NGTTM 3rd Story Expansion Frame亲和层析系统纯化目的蛋白。
甲壳素脱乙酰酶(AnCDA,GeneBank ID:EAA66447)采用上述相同方法制备,所用缓冲液为50 mmol/L TrisHCl(pH 8.0),纯化缓冲液为含300 mmol/L NaCl的50 mmol/L TrisHCl(pH 8.0)。
1.3.3 酶活力的测定
甲壳素酶活力采用DNS 法测定。 反应体系含50 μL 酶液与10 mg/mL 胶体甲壳素(柠檬酸缓冲液配制),以煮沸失活的酶液作为空白对照。 1 个酶活力单位(U)定义为每小时产生1 μmol 还原糖(GlcNAc)所需的酶量。
甲壳素脱乙酰酶活力采用乙酸检测试剂盒测定:以胶体甲壳素为底物,在pH 8.0 的TrisHCl 缓冲体系中反应,离心(13 800 ×g,4 ℃,10 min)去除不溶性底物,利用乙酸试剂盒测定释放的乙酸量。 1 个酶活力单位(U)定义为每小时生成1 μmol 乙酸所需的酶量。
1.3.4 甲壳素酶与甲壳素脱乙酰酶的协同作用
以10 mg/mL 胶体甲壳素为底物,在pH 7. 0 的磷酸缓冲体系中,将甲壳素酶CSChiG、CSChiL、CSChiO 分别与甲壳素脱乙酰酶AnCDA 按1∶1 体积比进行反应。 反应结束后,分别测定甲壳素酶催化产生的还原糖量与脱乙酰酶催化产生的乙酸量。
1.3.5 双酶协同条件优化
为提升双酶体系对胶体甲壳素的协同降解效果,对反应体系中的酶添加比例进行优化。 以10 mg/mL预处理后的甲壳素为底物,设置不同酶配比(4∶1、2∶1、1∶1、1∶2、1∶4)构建反应体系。 还原糖含量采用DNS法测定;乙酸含量采用商品化乙酸检测试剂盒测定。
甲壳素酶协同效应定义为:双酶体系(甲壳素酶+甲壳素脱乙酰酶)产生的还原糖量与单一组分甲壳素酶产生还原糖量的比值,如公式(1)所示:
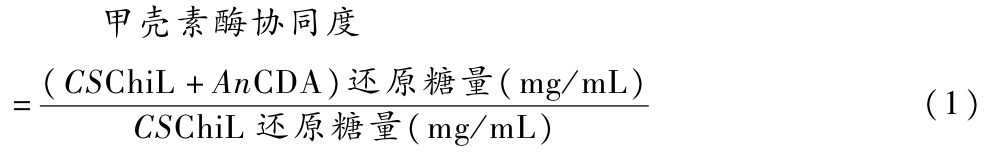
甲壳素脱乙酰酶协同效应定义为:双酶体系释放的乙酸量与单一组分甲壳素脱乙酰酶释放乙酸量的比值[18],如公式(2)所示:
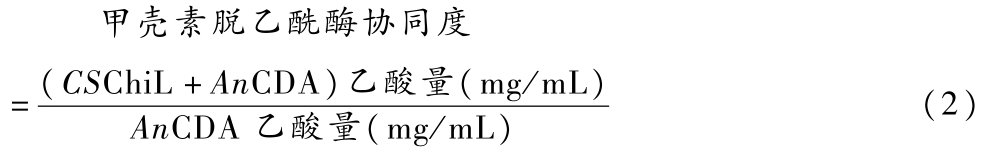
为确定双酶协同作用的最适反应温度与pH,分别在不同温度(30 ~60 ℃)及不同pH 条件下测定甲壳素酶与甲壳素脱乙酰酶的活性。 所用缓冲体系为:柠檬酸-Na2HPO4(pH 4.0 ~6.0)、Na2HPO4-NaH2PO4(pH 7.0)及Tris-HCl(pH 8.0 ~9.0)。
将酶活力比为2∶1 的混合酶液(CSChiL +AnCDA)于50 ℃或不同pH(4.0 ~9.0)条件下预孵育2 h,随后加入胶体甲壳素底物测定残余酶活力。 以最高活力为100%,分别计算不同温度下的相对酶活力。
1.3.6 水解产物HPLC 分析
采用HPLC 对胶体甲壳素的水解产物进行分析。色谱柱为Shodex Asahipak NH2P-50 4E 色谱柱(粒径5 μm,4.6 mm ×250 mm)。 检测波长为210 nm,流动相为乙腈-超纯水(70∶30,体积比),流速0.7 mL/min,进样量10 μL,柱温维持30 ℃[11]。
1.3.7 MALDI-TOF 质谱分析
采用MALDI-TOF-MS 进行分析。 取0.5 μL 水解液与0.5 μL 基质溶液(2,5-二羟基苯甲酸)依次点样于MTP 384 抛光钢靶板,室温下自然干燥。 质谱图以阳离子模式采集,全扫描(100 ~1 000 m/z)。
1.3.8 FT-IR 分析
采用FT-IR 测定反应后固体底物的脱乙酰度(degree of deacetylation,DDA)。 将样品与干燥KBr(2%,质量分数)混合研磨均匀,以透射模式在4 000 ~400 cm-1波数范围内扫描,分辨率4 cm-1。 DDA 按公式(3)基于特征吸收峰强度计算:
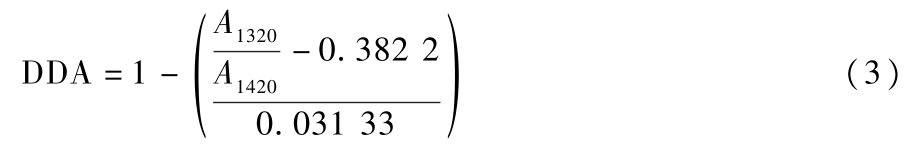
式中:A1320与A1420分别代表1 320 cm-1 与1 420 cm-1处的透射率[15]。
1.3.9 粘均分子质量测定
采用乌氏粘度计(毛细管直径Φ=X mm),于30 ℃条件下测定粘均分子质量(Mw)。 根据流出时间计算特性粘数[η],并代入Mark-Houwink-Sakurada 方程计算分子质量,如公式(4)所示:
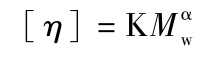
其中α =0.95,K =7.6 ×10⁻⁵ dL/g,样品溶解在5%(质量分数)的LiCl/DMAc[19]。
1.3.10 XRD 分析
采用X 射线衍射仪对甲壳素、胶体甲壳素及酶反应产物的结晶特性进行分析。 衍射源为Cu Kα 靶(λ =0.154 06 nm),最大功率3 kW(40 kV,75 mA),配备自动光束聚焦与发散控制。 X 射线衍射图谱在2θ 扫描范围5° ~45°内以5°/min 的速率采集[20]。
2 结果与分析
2.1 甲壳素酶与甲壳素脱乙酰酶的协同降解
通过测定还原糖与乙酸的释放量, 评估了CSChiG、CSChiL、CSChiO 分别与甲壳素脱乙酰酶AnCDA 协同降解胶体甲壳素的效果(图1)。 双酶体系(甲壳素酶+AnCDA)的还原糖产量显著高于单一甲壳素酶组。 具体而言,CSChiL +AnCDA 组合产生的还原糖量为单独CSChiL 的1.7 倍,CSChiO + AnCDA组合为单独CSChiO 的1. 5 倍。 此外,与单独使用AnCDA 相比,双酶协同作用可提高乙酸生成量。 综合其较高的还原糖产量与适中的乙酸生成量,选择CSChiL +AnCDA 甲壳素资源化利用组合做后续研究。
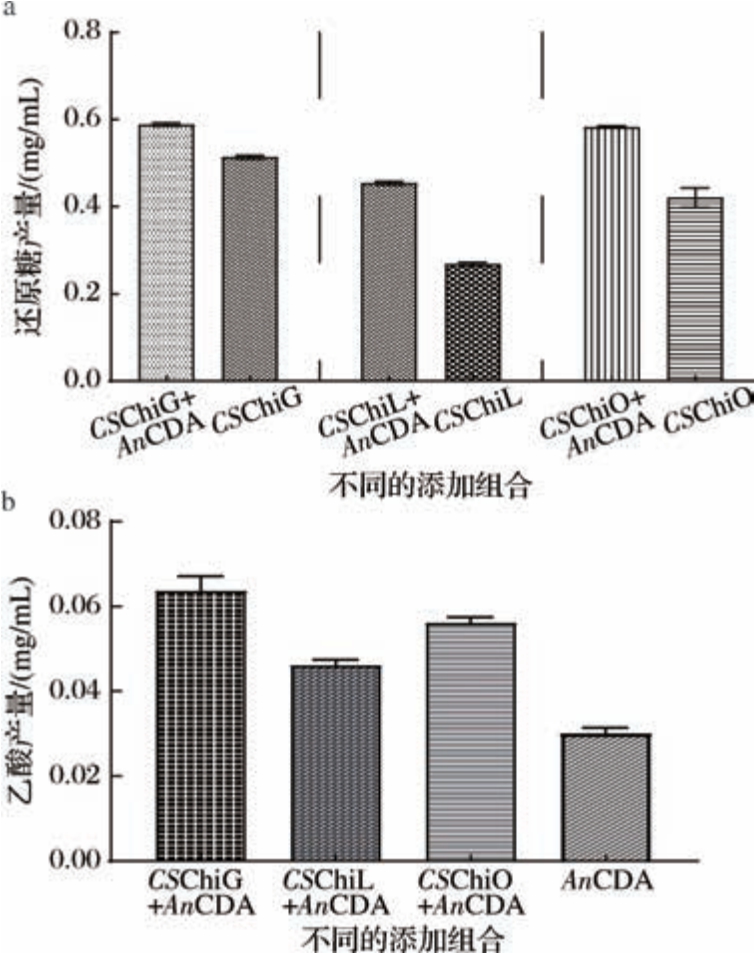
图1 不同混合酶组合产生的还原糖和乙酸的量
Fig.1 Reducing sugars and acetic acid produced by different combinations of enzyme mixtures
2.2 双酶协同体系优化
为了优化CSChiL +AnCDA 系统对胶体甲壳素的降解效率,系统研究了酶活力比例对降解效果的影响。 协同作用程度定义为2 种酶共同使用时释放产物的速率或产率与混合物中每种酶单独使用时速率或产率之和的比值。 如图2 所示,基于还原糖产量(反映甲壳素酶活力)和乙酸释放量(指示甲壳素脱乙酰酶活力) 评估协同效应。 2 ∶1 的酶活力比例(CSChiL∶AnCDA)实现了最高的还原糖产量,协同程度为2.08(相对于单独使用CSChiL)。 1∶1 的酶活力比产生了最高的乙酸含量,协同度为1.5(相对于单独使用AnCDA)。 当酶活力比为2∶1 时,甲壳素酶与甲壳素脱乙酰酶达到最佳平衡,可同时获得较高的还原糖产量与乙酸生成量。 因此,后续降解实验均采用2∶1 的酶活力比例。
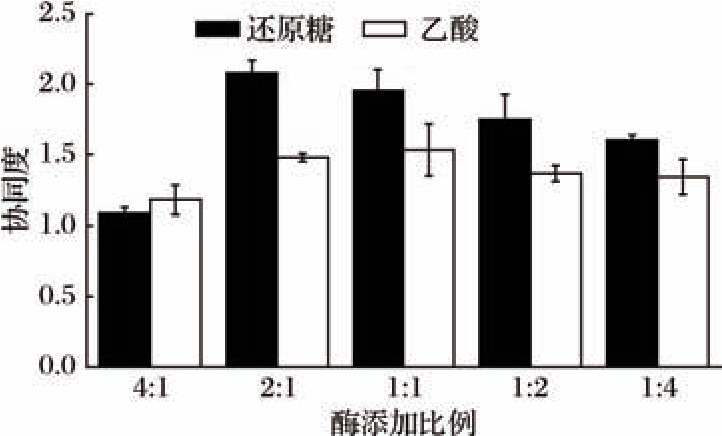
图2 甲壳素酶与甲壳素脱乙酰酶添加酶活力比
Fig.2 The ratio of chitinase to chitin deacetylase actioity
基于CSChiL(单酶最适温度45 ℃)和AnCDA(单酶最适温度50 ℃)的酶学特性,选择了这2 种酶进行协同效果探究。 考虑到图3-A ~图3-B 的热稳定性实验的结果,选择50 ℃作为反应温度。 这一优化的温度既降低了热失活的风险,又确保了高效的酶协同作用。
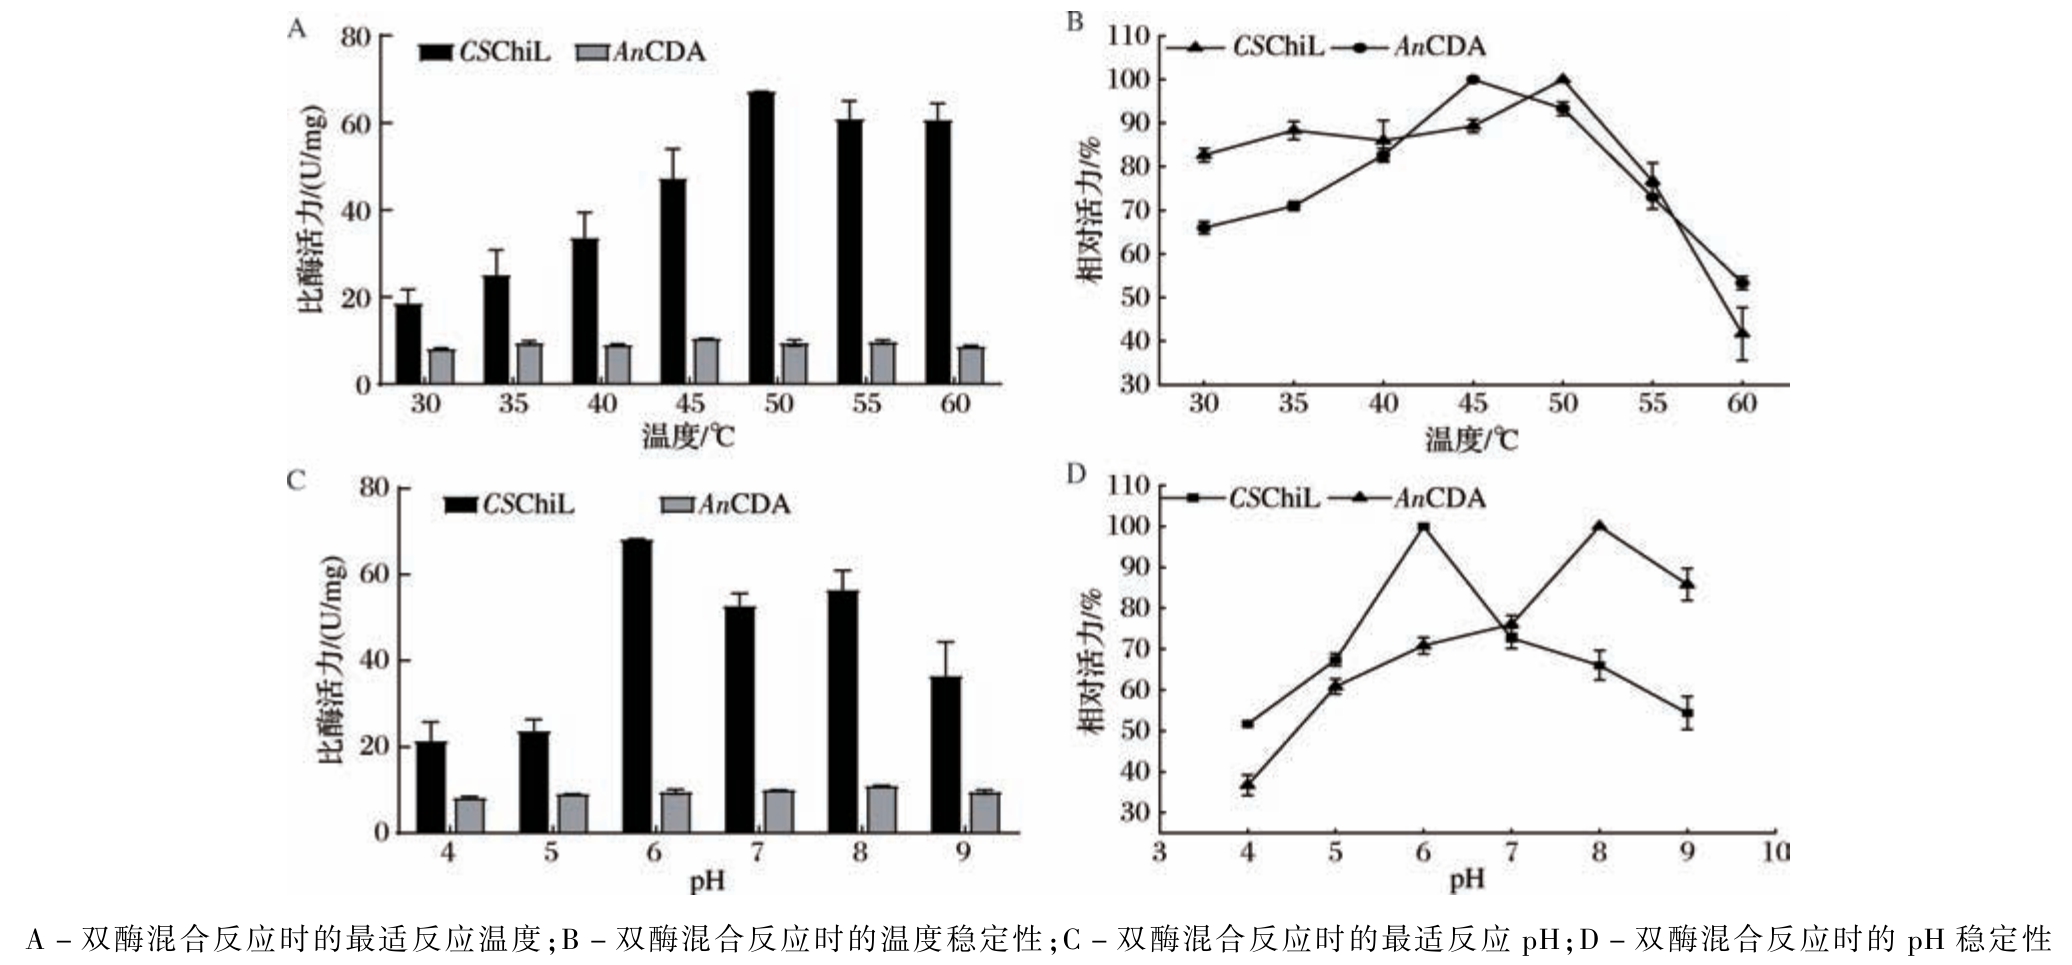
图3 双酶体系的温度与pH 特性及稳定性
Fig.3 Temperature pH characteristics and stability of the dual enzyme system
如图3-C ~图3-D 所示,CSChiL 在pH 6.0 的柠檬酸-Na2HPO4 缓冲液中表现出最大活性。 在pH 6.0 ~9.0 内,AnCDA 在孵育2 h 后仍保持60%以上的残余活性。 在后续实验中,选择了柠檬酸-Na2HPO4 缓冲液(pH 6.0)。
2.3 产物分析
2.3.1 HPLC
为了初步了解双酶协同作用胶体甲壳素产生的寡糖组成,采用HPLC 分析了其水解产物(图4)。 与标准甲壳素寡糖[(GlcNAc)1 -6]相比,2 种体系均产生(GlcNAc)1 -3 作为水解产物。 然而,与单独使用CSChiL 相比,双酶体系显著提高了(GlcNAc)2 的产量,而GlcNAc 和(GlcNAc)3的水平保持不变。
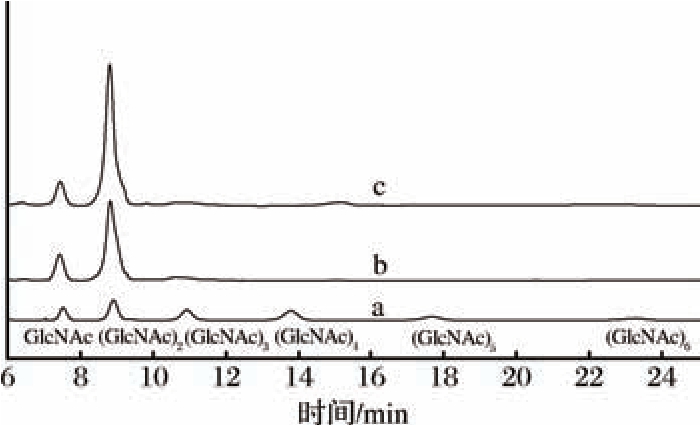
图4 胶体甲壳素降解产物及标准品的HPLC 检测图
Fig.4 HPLC plot of colloidal chitin degradation products and standards
注:a,标准品(GlcNAc)1 -6;b,单独使用CSChiL 作用;c,CSChiL +AnCDA 协同作用。
2.3.2 MALDI-TOF-MS
在正离子模式下,对胶体甲壳素水解产生的脱乙酰化产物进行MALDI-TOF-MS 分析,结果显示出与[M +H]+或[M +Na]+相对应的分子离子峰,其中A 表示GlcNAc,D 表示葡糖胺(glucosamine,GlcN)。为了进一步表征CSChiL + AnCDA 协同体系产生的寡糖组成,对反应上清液进行了MALDI-TOF-MS分析。 如图5 的质谱所示, 水解产物主要由(GlcNAc) 2 组成,含有少量GlcN、GlcNAc、A2D1 和微量(GlcNAc)3。 尽管AnCDA 对(GlcNAc)2 表现出单脱乙酰化模式,可能生成A1D1,但未检测到对应该产物的明显峰。
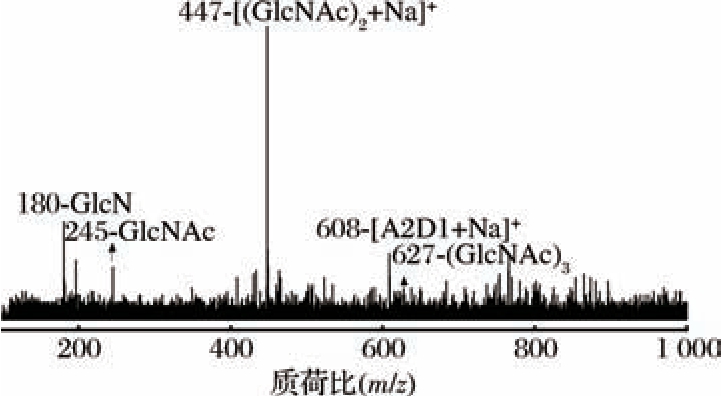
图5 胶体甲壳素降解产物的质谱检测图
Fig.5 Mass spectrometric detection of degradation products of colloidal chitin
为阐明CSChiL 与AnCDA 的协同作用效果,本研究进一步通过MALDI-TOF-MS 分析了双酶体系对(GlcNAc)2 的水解产物(图6)。 产物鉴定包括GlcN、(GlcNAc)2、(GlcNAc)3、(GlcNAc)4、A1D2 及A2D1,其中A 代表GlcNAc,D 代表葡糖胺(GlcN)。 根据Bhuvanachandra 等[12]之前的研究可知,CSChiL 水解(GlcNAc)6 的产物有(GlcNAc)2、(GlcNAc)3 以及(GlcNAc)4。 AnCDA 对(GlcNAc)3 的脱乙酰能力较强,对(GlcNAc)4 和(GlcNAc)2 的脱乙酰能力相对较差。 根据2 种酶的作用方式可以推测,在双酶体系中,CSChiL 先对(GlcNAc)6 发起作用,产生(Glc-NAc)2、(GlcNAc)3和(GlcNAc)4,而后AnCDA 对降解后的低聚糖进行脱乙酰,首先对长链的(GlcNAc)3 脱乙酰,生成A1D2 和A2D1,最后CSChiL 又会发挥降解作用,生成GlcN 和(GlcNAc)2,这可能是CSChiL +AnCDA 水解胶体甲壳素时(GlcNAc)2 增多的原因。 前期研究已证实,甲壳素脱乙酰酶AnCDA 对(GlcNAc)2的脱乙酰效率显著低于对(GlcNAc)3 的效率[13],这一结论与本研究体系中仅检测到少量部分脱乙酰中间体的实验结果高度吻合。 本研究水解产物中(GlcNAc)2 含量较多,进一步印证了CSChiL 的持续性内切活性特征:该酶优先切割甲壳素链内部的β-1,4-糖苷键,定向生成二聚体产物[11]。 同时,体系中脱乙酰衍生物(A2D1)的检出量极低,表明AnCDA 对(GlcNAc)3 等较长寡聚物或甲壳素聚合物的特定区域发挥脱乙酰作用,这与前期提出的推测相符。
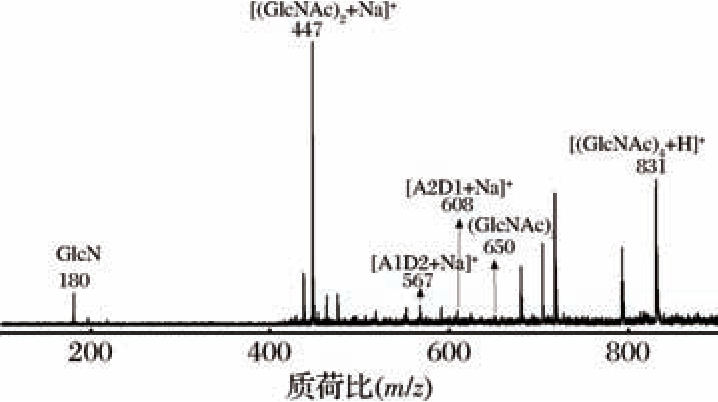
图6 CSChiL 和AnCDA 混合作用(GlcNAc)6 产物质谱检测图
Fig.6 Mass spectrometric detection of CSChiL and AnCDA mixed action (GlcNAc)6 products
2.3.3 产物生成量
甲壳素酶对胶体甲壳素的降解作用可通过产生的还原糖量来反映。 为了评估CSChiL +AnCDA 组合在一段时间内的降解效果,采用DNS 法检测了不同时间点的还原糖产量。 如图7-A 所示,反应12 h 后,单独使用CSChiL 产生的还原糖量为(1.35 ±0.02) mg/mL,而CSChiL + AnCDA 系统的还原糖产量则达到了(4.13 ±0.02) mg/mL,提高了2.13 倍。
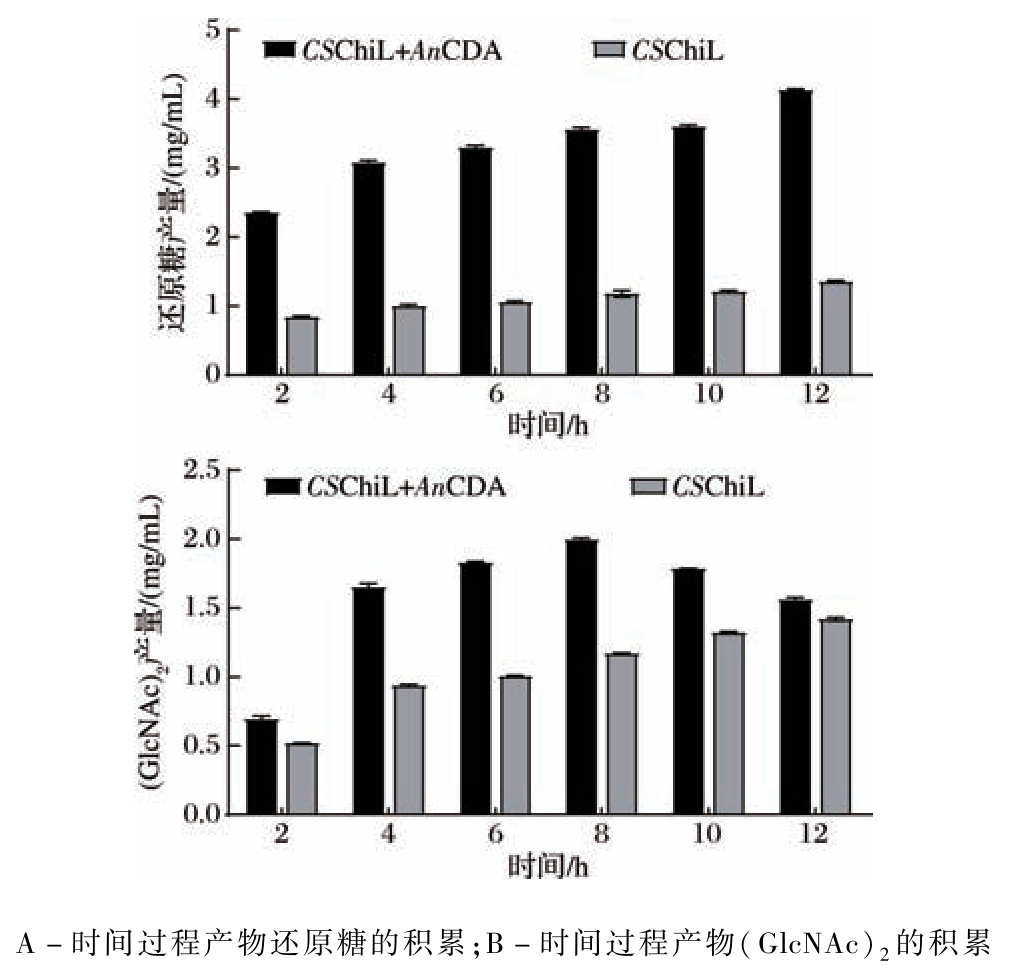
图7 降解产物还原糖的分析
Fig.7 Analysis of reducing sugars of degradation products
大多数单一甲壳素酶水解不溶性甲壳素得到的主要寡糖是GlcNAc 和(GlcNAc)2。 由图4 可知,胶体甲壳素经CSChiL 及CSChiL + AnCDA 降解产物的HPLC 分析显示,CSChiL +AnCDA 系统对胶体甲壳素的降解作用提高了(GlcNAc)2 的产量。 为了进一步探究(GlcNAc)2产量的变化,使用HPLC 检测了不同时间段内(GlcNAc)2 的产量。 如图7-B 所示,单独使用CSChiL 时,12 h 时(GlcNAc)2 的产量达到最大值,为(1.42 ±0.01) mg/mL。 在CSChiL + AnCDA 降解系统中,(GlcNAc)2 的产量先增加后减少,当反应进行到8 h 时,(GlcNAc)2 的产量达到最大值(1. 99 ±0.01) mg/mL,之后产量呈下降趋势。 这可能是由于反应时间延长导致酶活力下降,而酶活力受环境和其他因素的影响。 也可能是由于AnCDA 作为脱乙酰酶持续作用,底物的乙酰化程度发生变化,以及CSChiL的作用发生变化。 Sikorski 等[21]通过研究粘质沙雷氏菌(Serratia marcescens)产生的甲壳素酶ChiA、ChiB和ChiC 对壳聚糖的降解作用,阐明了不同乙酰化程度的壳聚糖的降解情况。 他们通过研究这些酶的作用方式,并检测水解反应中相关参数的变化,指出甲壳素酶的催化机制与底物中的乙酰化单元有关,且不同乙酰化程度的壳聚糖也会影响酶解产物。
2.4 不溶性成分分析
收集反应过程中剩余的不溶性组分,测定其分子质量分布及脱乙酰度,探讨其性质变化趋势,并揭示这些变化与双酶协同作用的内在联系。 如图8-A 所示,在CSChiL 与AnCDA 组成的双酶体系(CSChiL +AnCDA)中,反应24 h 后不溶性组分的脱乙酰度达到(49 ±0.65)%,而单独添加AnCDA 的对照组中仅为(36 ±0.6)%。 这表明,CSChiL 的存在可能改变了胶体甲壳素的底物结构,从而有利于AnCDA 的脱乙酰作用。 CSChiL 作用于胶体甲壳素后,可能产生更多长链的完全乙酰化壳寡糖片段,而AnCDA 优先作用于完全乙酰化的壳寡糖。 研究表明,甲壳素脱乙酰酶对壳寡糖的活性普遍高于对长链多糖的活性,这可能是由于甲壳素分子合成初期,分子间氢键等相互作用尚未充分建立,乙酰基团在空间上更为暴露,从而有利于甲壳素脱乙酰酶的接近。 这一机制有助于解释在双酶协同作用下,随着反应进行脱乙酰度变化更为显著的现象——双酶协同加速了底物向更易作用形态的转化。
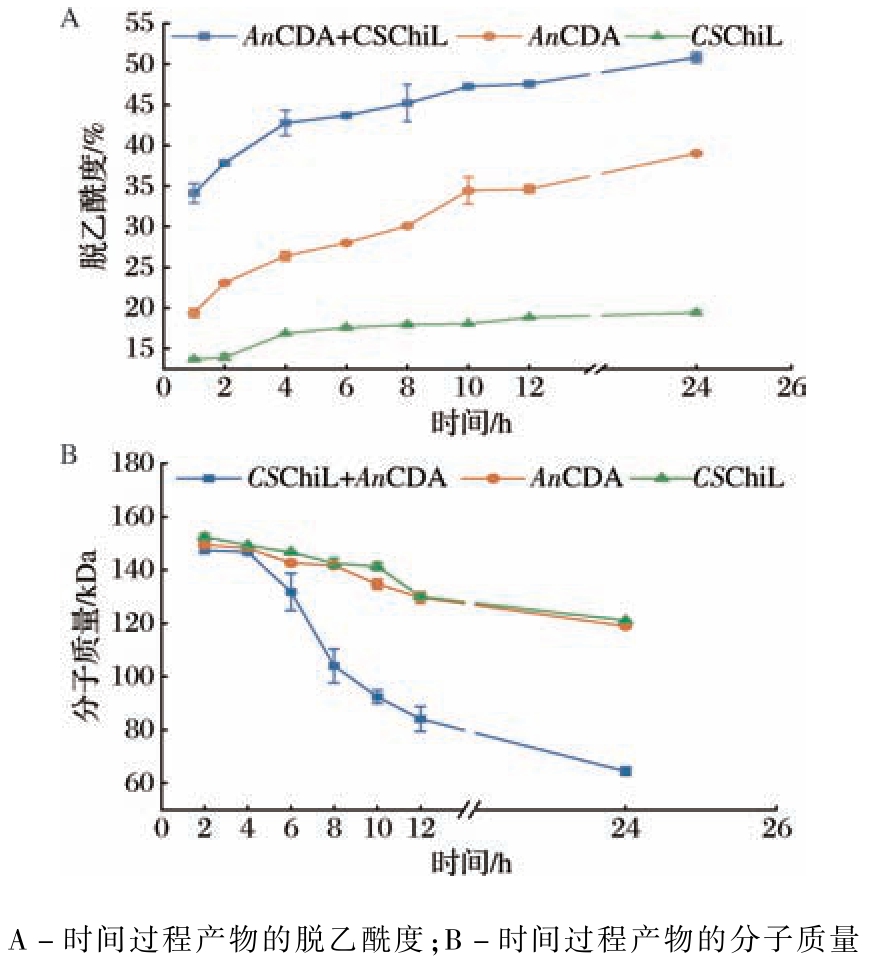
图8 不溶性成分随时间过程脱乙酰度和分子质量的变化
Fig.8 Changes in deacetylation and molecular weight of insoluble components with time course
如图8-B 所示,未完全溶解的胶体甲壳素分子质量随时间延长而逐渐降低。 经CSChiL 或AnCDA 单独水解24 h 后,胶体甲壳素的分子质量分别为(121.0±0.27) kDa 和(118. 9 ± 0. 48) kDa;而经CSChiL +AnCDA 协同作用24 h 后,胶体甲壳素的分子质量降至(64.4 ±0. 9) kDa。 这表明,CSChiL 与AnCDA 的协同作用不仅体现在脱乙酰反应中,也体现在对胶体甲壳素的降解过程中,二者协同作用使分子质量显著降低。 CSChiL 可能先对胶体甲壳素进行初步降解,使其分子链结构松散,暴露更多作用位点;AnCDA 可进一步作用于这些初步降解产物,通过脱乙酰反应破坏分子内化学键,导致分子链断裂,分子质量持续下降。 二者的相互协同使得胶体甲壳素的降解效率显著高于相同时长下的单一酶作用。
甲壳素及其衍生物在1 555 cm-1、3 480 cm-1、3 264 cm-1、1 020 ~1 160 cm-1处展现出相似的特征峰,这些峰分别对应酰胺Ⅱ、OH—伸缩振动、NH—伸缩振动和CO—伸缩振动[22]。 在此情况下,由OH—伸缩振动和NH—伸缩振动所代表的峰的宽度反映了样品中氢键的强度。 甲壳素酶与甲壳素的结合与其在甲壳素表面的行为相对应,而高蛋白含量的甲壳素会在1 555 cm-1处产生吸收峰[23]。 如图9 所示,在CSChiL+AnCDA 协同降解后,胶体甲壳素在1 555 cm-1和1 312 cm-1 处的酰胺Ⅱ和酰胺Ⅲ吸收带降低,而1 415 cm-1处的峰变尖锐,这可能表明脱乙酰化作用有所增加。 同时,在1 454 cm-1 附近出现了一个弱峰,根据先前的研究,在蛋白质存在的情况下,吸收峰变弱会产生弱峰[15]。 当甲壳素脱乙酰酶和甲壳素酶混合使用时,会产生更好的降解效果并促进脱乙酰化。 这一结果也验证了上述数据。
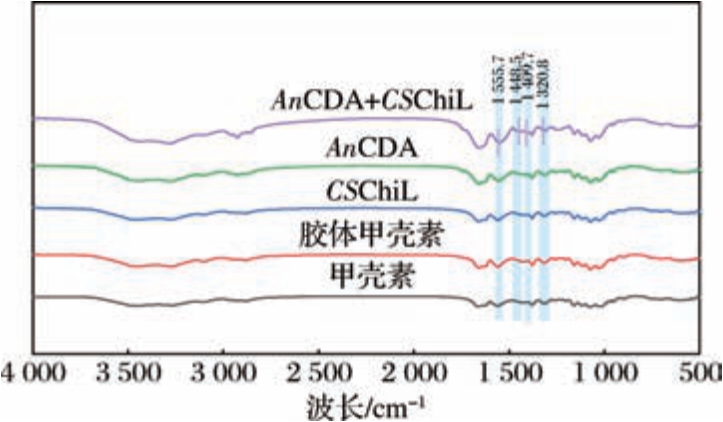
图9 傅里叶红外光谱分析
Fig.9 Fourier infrared spectroscopy analytical graphs
通过分析XRD 特征峰(2θ ≈20°)[24]的强度变化,比较酶解处理前后甲壳素的结晶度,以此验证甲壳素脱乙酰酶对分子间氢键网络的破坏作用。 如图10 所示,经双酶体系(CSChiL +AnCDA)协同处理后,甲壳素结晶峰强度显著低于单一酶(CSChiL 或AnCDA)处理组,表明双酶协同可降低甲壳素结晶度。 该结果说明,在双酶协同体系中,胶体甲壳素在脱乙酰作用与酶解作用的共同影响下,其紧密的氢键网络被进一步破坏,从而显著提升底物的酶可及性,提高酶解效率。 酶解处理后的底物在2θ≈32°处出现新的衍射峰,这可能是由于酶解过程中部分蛋白质吸附于底物表面所致。 Beaney 等[25]在甲壳素脱乙酰酶法改性研究中也报道过类似现象,认为该峰源于底物与蛋白质形成复合物。
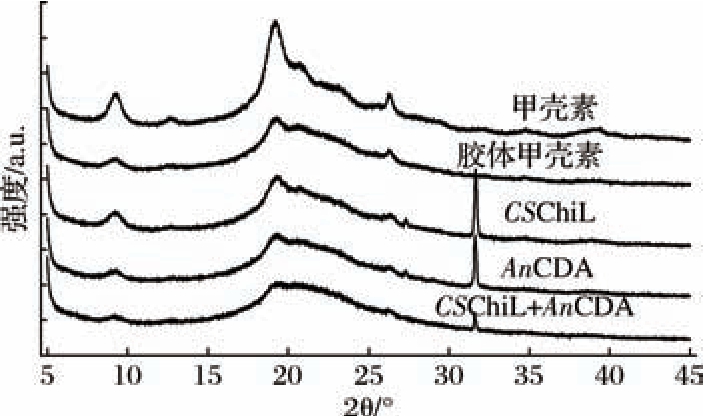
图10 X 射线衍射图谱
Fig.10 X-ray diffraction patterns
3 结论与讨论
本研究构建了甲壳素酶CSChiL 与甲壳素脱乙酰酶AnCDA 的双酶协同体系,用于降解胶体甲壳素,并通过对水解后可溶性及不溶性组分的综合分析,评估了该体系的降解效能。 通过HPLC 及MALDI-TOFMS 等先进分析技术,证实CSChiL 与AnCDA 在胶体甲壳素水解过程中存在协同效应。 该双酶体系不仅显著提升了降解效率,还通过酶解-脱乙酰的逐级反应调控了产物组成,实现了(GlcNAc)2 等特定寡糖的定向积累。 相较于单一酶体系,该双酶体系对胶体甲壳素的水解具有积极的促进作用,同步增强了降解效率与脱乙酰效果,为相关应用提供了新的理论依据与潜在技术支撑。
[1] Kumari R, Kumar M, Vivekanand V, et al. Chitin biorefinery:a narrative and prophecy of crustacean shell waste sustainable transformation into bioactives and renewable energy[J]. Renewable and Sustainable Energy Reviews, 2023, 184:113595.
[2] Brain L D, Bleackley M, Doblin M S, et al. Fungal chitin synthases:Structure, function and regulation[J]. Journal of Fungi, 2026,12(1):45.
[3] He B, Yang L Y, Yang D F, et al. Biochemical purification and characterization of a truncated acidic, thermostable chitinase from marine fungus for N-acetylglucosamine production[J]. Frontiers in Bioengineering and Biotechnology, 2022, 10:1013313.
[4] Chen W, Jiang X, Yang Q. Glycoside hydrolase family 18 chitinases:The known and the unknown[J]. Biotechnology Advances,2020, 43:107553.
[5] Xu Y, OuYang B, Deng L Y, et al. Biochemical characterization of a novel hyperthermophilic chitinase from a deep-sea Thermotogae bacterium[J]. Process Biochemistry, 2024, 143:60 -72.
[6] Li J, Mao X, Liu Z, et al. Enzymatic degradation of chitin:A sustainable and precise alternative to chemical hydrolysis[J]. ACS Sustainable Chemistry & Engineering, 2020, 8 (34):12705 -12718.
[7] Dahiya N, Tewari R, Hoondal G S. Biotechnological aspects of chitinolytic enzymes:A review[J]. Applied Microbiology and Biotechnology, 2006, 71(6):773 -782.
[8] Sato K, Kato Y, Fukamachi A, et al. Construction and analysis of a bacterial community exhibiting strong chitinolytic activity[J]. Bioscience, Biotechnology, and Biochemistry, 2010, 74(3):636 -640.
[9] Sato K, Kato Y, Taguchi G, et al. Chitiniphilus shinanonensis gen.Nov., sp. Nov., a novel chitin-degrading bacterium belonging to Betaproteobacteria[J]. The Journal of General and Applied Microbiology, 2009, 55(2):147 -153.
[10] Sivaramakrishna D, Bhuvanachandra B, Nadendla S R, et al. Efficient conversion of α-chitin by multi-modular chitinase from Chitiniphilus shinanonensis with KOH and KOH-urea pretreatment[J].Carbohydrate Polymers, 2020, 250:116923.
[11] Bhuvanachandra B, Podile A R. A transglycosylating chitinase from Chitiniphilus shinanonensis (CsChiL) hydrolyzes chitin in a processive manner[J]. International Journal of Biological Macromolecules, 2020, 145:1 -10.
[12] Bhuvanachandra B, Sivaramakrishna D, Alim S, et al. Deciphering the thermotolerance of chitinase O from Chitiniphilus shinanonensis by in vitro and in silico studies[J]. International Journal of Biological Macromolecules, 2022, 210:44 -52.
[13] Liu Z L, Gay L M, Tuveng T R, et al. Structure and function of a broad-specificity chitin deacetylase from Aspergillus nidulans FGSC A4[J]. Scientific Reports, 2017, 7:1746.
[14] Qing L W, Gao J, Du L H, et al. Chitinase and deacetylase-based chitin-degrading bacteria:One-pot cascade bioconversion of chitin to chitooligosaccharides [ J]. Journal of Agricultural and Food Chemistry, 2024, 72(43):23937 -23946.
[15] Hong S, Yuan Y, Yang Q R, et al. Versatile acid base sustainable solvent for fast extraction of various molecular weight chitin from lobster shell[J]. Carbohydrate Polymers, 2018, 201:211 -217.
[16] Li J, Huang W C, Gao L, et al. Efficient enzymatic hydrolysis of ionic liquid pretreated chitin and its dissolution mechanism[J].Carbohydrate Polymers, 2019, 211:329 -335.
[17] 郭依依.双菌株协同发酵产甲壳素脱乙酰酶的研究[D]. 武汉:湖北工业大学, 2021.Guo Y Y. Study on co-fermentation by two strains for the production of chitin deacetylase[D]. Wuhan:Hubei University of Technology, 2019.
[18] Van Dyk J S, Pletschke B I. A review of lignocellulose bioconversion using enzymatic hydrolysis and synergistic cooperation between enzymes:Factors affecting enzymes, conversion and synergy[J].Biotechnology Advances, 2012, 30(6):1458 -1480.
[19] Cárdenas G, Cabrera G, Taboada E, et al. Chitin characterization by SEM, FTIR, XRD, and 13 C cross polarization/mass angle spinning NMR[J]. Journal of Applied Polymer Science, 2004, 93(4):1876 -1885.
[20] Zhong Y, Zhang X, Zhang Q, et al. Rapid dissolution of chitin and chitosan with degree of deacetylation less than 80% in KOH/urea aqueous solution[J]. Green Chemistry,2023,25(21):8593 -8605.
[21] Sikorski P, Sørbotten A, Horn S J, et al. Serratia marcescens chitinases with tunnel-shaped substrate-binding grooves show endo activity and different degrees of processivity during enzymatic hydrolysis of chitosan[J]. Biochemistry, 2006, 45(31):9566 -9574.
[22] Zhou X, Liu Q Z, Chen X M, et al. Enzymatic hydrolysis of chitinous wastes pretreated by deep eutectic solvents into N-acetyl glucosamine[J]. Polymer Degradation and Stability, 2024, 227:110907.
[23] Zhang Q, Zhang X Y, He Y C, et al. The synergistic action of two chitinases from Vibrio harveyi on chitin degradation[J]. Carbohydrate Polymers, 2023, 307:120640.
[24] Kumari S, Kumar Annamareddy S H, Abanti S, et al. Physicochemical properties and characterization of chitosan synthesized from fish scales, crab and shrimp shells[J]. International Journal of Biological Macromolecules, 2017, 104:1697 -1705.
[25] Beaney P D, Gan Q, Magee T R A, et al. Modification of chitin properties for enzymatic deacetylation[J]. Journal of Chemical Technology & Biotechnology, 2007, 82(2):165 -173.