近年来,随着“健康中国”战略的推进以及全球范围内对功能食品和肠道健康研究的持续加深,益生菌在食品、医药和畜牧养殖等领域的应用需求显著增长[1-2]。 益生菌通过调节肠道微生态平衡、改善营养吸收、增强免疫功能等多重途径,对宿主健康发挥积极作用,已成为营养健康领域的重要研究方向[3]。 然而,传统益生菌(如乳酸菌和双歧杆菌)在实际应用中仍面临诸多限制,存在耐热性差、对胃酸和胆盐敏感等问题,导致其在复杂加工条件、货架贮藏及宿主消化道转运过程中的活菌存活率显著降低,难以在肠道内实现稳定定植,从而限制了其功能的发挥[4]。
凝结魏茨曼氏菌(Weizmannia coagulans)具有兼性厌氧代谢及产芽孢的生物学特性,较传统益生菌(如保加利亚乳杆菌、双歧杆菌、嗜热链球菌等[5])展现出更易产业化应用的核心优势[6];其形成的致密芽孢结构赋予了菌株极强的抗逆性,能耐受100 ℃高温及pH 2.0 ~3.0 的胃酸环境[7]。 孔素芬等[3]研究证实,该菌株的芽孢在酸性或高温胁迫下的存活率均高于90%,这一特性可确保其在肠道定植后,能够可持续发挥生理功能。 这种优异的加工适应性使得凝结魏茨曼氏菌在食品行业得到广泛应用,显著拓展其使用场景[8]。 此外,该菌代谢产生的乳酸能够降低肠道pH 值,抑制致病菌生长并促进有益菌增殖,形成肠道微生态的正向调节[9];其分泌的淀粉酶、木聚糖酶和蛋白酶等功能酶系,进一步提升其在工业原料利用与营养转化方面的潜能[10]。
随着分子生物学和多组学技术的发展,凝结魏茨曼氏菌的生物学特性及功能机制得到了更为系统和深入的解析。 夏紫嫣等[11]研究发现,凝结魏茨曼氏菌菌株具有调节肠道微生物群组成、缓解肠道炎症的能力;李成等[12] 研究证实凝结魏茨曼氏菌CGMCC9951 可以通过提高抗氧化能力从而维持肠道的稳定,改善酒精性肝损伤。 此外,凝结魏茨曼氏菌分泌的多种消化酶和功能性代谢产物在促进营养物质消化吸收、改善糖脂代谢紊乱以及缓解炎症相关疾病方面展现出良好的应用潜力[1]。 尽管凝结魏茨曼氏菌展现出显著的应用优势,但当前针对该菌的研究仍存在诸多不足:不同菌株功能异质性显著,但缺乏统一的评价标准,功能性代谢产物的作用机制尚未完全阐明;产业化层面还面临芽孢萌发效率调控难、规模化制备工艺成本高、临床验证数据不足、产品质量控制体系不完善等问题。 本研究系统梳理凝结魏茨曼氏菌的生物学特性、功能机制及产业化应用现状,旨在弥补当前研究中对其菌株特异性、代谢机制与产业化关键技术整合分析的欠缺,为解决其产业化应用瓶颈、推动精准开发提供理论依据。
1 凝结魏茨曼氏菌的生物学特性研究进展
1.1 凝结魏茨曼氏菌的发现历程
凝结魏茨曼氏菌最早于1915 年从变质炼乳中分离获得,最初被归为芽孢杆菌属,因兼具产乳酸和形成芽孢的独特特性,其分类学地位长期受到关注[4]。近年来,随着分子生物学技术的发展,该菌株的特性逐渐被发掘并完善,发展历程如表1 所示。
表1 凝结魏茨曼氏菌的发展历程
Table 1 Development history of W.coagulans

阶段时间详情文献1915 年从变质炼乳中首次分离出该菌,记录其生长特性,发现厌氧条件下可发酵糖类生成大量L-乳酸[4]早期分离与表型认识阶段1932 年正式命名凝结芽孢杆菌(Bacillus coagulans)[4]1957 年对该类细菌分类做出明确记载[4]分子系统发育阶段1993 年通过16S rRNA 基因分析揭示了凝结芽孢杆菌与枯草芽孢杆菌群(Bacillus subtilis group)的亲缘关系较远[13]2020 年对芽孢杆菌展开系统基因组学比较分析—全基因组系统2021 年对92 株芽孢杆菌的全基因组构建系统发育树,确立了魏茨曼芽孢杆菌属(Weizmannia)[14]学重构阶段 2021 年使用分子生物学技术深入研究,测定全基因组序列,分析基因组成[15]2023 年基于全基因组序列的魏茨曼菌属重新分类研究,明确该菌分类学地位的重构依据[16]研究现状2023 年至今目前许多试验正在评估不同魏茨曼芽孢杆菌属菌株在人体健康中的益处,包括改善肠易激综合征(irritable bowel syndrome,IBS)相关腹泻、预防抗生素相关性腹泻、通过抑制病原菌和调节炎症信号来减少皮肤痤疮等方向[17 -19]
注:—表示无引用文献。
1.2 凝结魏茨曼氏菌的形态学特征
凝结魏茨曼氏菌是一种革兰氏阳性杆菌。 在显微镜下,菌体呈现两端钝圆的杆状,通常以单个或短链形式排列,如图1-b 所示。 其最显著的特征之一是能够形成内生芽孢。 这些芽孢多为椭圆形,位于菌体中央或近端位置,如图1-c 所示[3]。 芽孢的形成赋予了该菌种极强的环境抗性,特别是耐热、耐酸和耐胆汁盐的能力,这对于其作为益生菌通过胃肠道并在肠道内定植至关重要[19]。
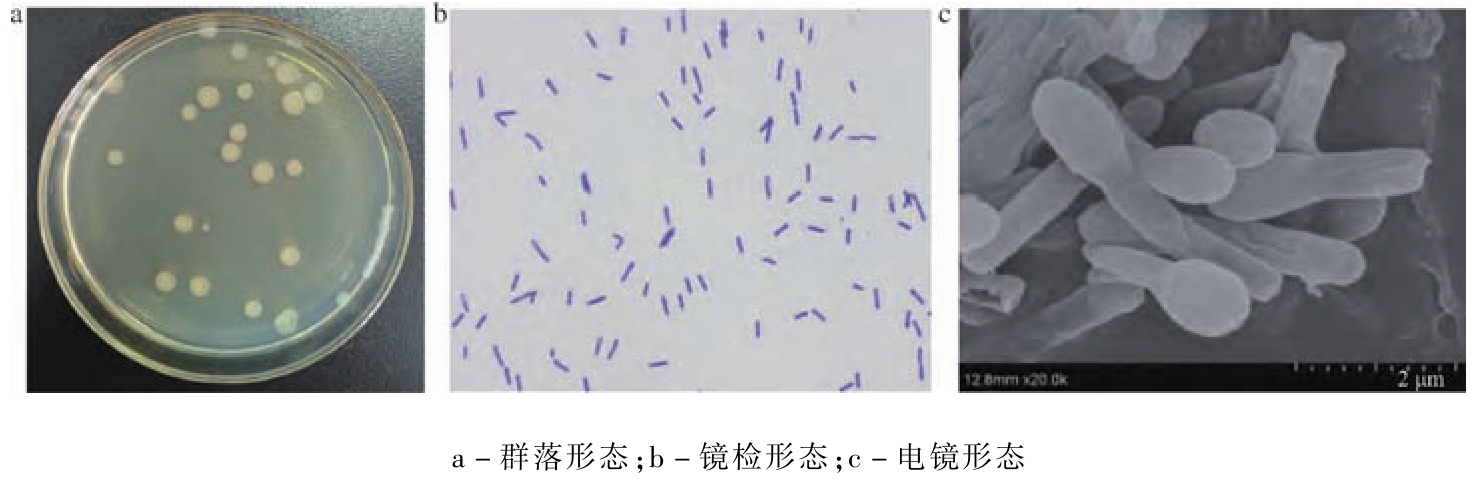
图1 凝结魏茨曼氏菌菌落和显微形态[3]
Fig.1 Colony and microscopic morphology of W.coagulans[3]
1.3 凝结魏茨曼氏菌的生理生化特征
1.3.1 基因组特征
全基因组测序分析显示,该菌株基因组通常为环状结构,大小约为3.0 ~3.5 Mb,包含约2 971 个蛋白编码基因和81 个RNA 基因[20-21]。 基因组中富集了大量与代谢功能、环境适应性相关的关键基因簇,为其多样性代谢功能提供了遗传基础。 在核心代谢途径方面,该菌以同型乳酸发酵为核心代谢途径,对葡萄糖、乳糖、蔗糖等六碳糖具有极强的利用效率[22],具体通过糖酵解途径(embden-meyerhof-parnas pathway,EMP)实现定向转化:六碳糖首先在己糖激酶催化下生成葡萄糖-6-磷酸,再经磷酸果糖激酶不可逆催化生成果糖-1,6-二磷酸,后续经醛缩酶、磷酸丙糖异构酶等作用生成丙酮酸,最终在L-乳酸脱氢酶(Llactate dehydrogenase,LDH-L)的立体选择性催化下转化为L-( + )-乳酸。 而在基因组中鉴定的多个LLDH 编码基因(如ldhl1、ldhl2、ldhl3 等),进一步强化了这一高效发酵过程,使得部分菌株发酵时乙酸、乙醇等副产物含量低于1 mol/L,乳酸光学纯度可达99%,远高于工业级聚乳酸(polylactic acid,PLA)合成对L-乳酸的纯度要求,使其成为工业化生产L-乳酸的优质菌株[23-26]。 在功能酶系统方面,基因组中富含编码α/β-半乳糖苷酶、植酸酶、热稳定脂肪酶、蛋白酶及木聚糖酶等多种工业用酶的基因,最适作用条件(温度30 ~70 ℃、pH 值为4 ~9)与该菌的生长特性相匹配,使其能适应多种加工环境[24],部分菌株(如凝结魏茨曼氏菌MA42 等[27])还含有环糊精葡萄糖基转移酶(cyclodextrin glycosyltransferase,CGTase)基因,具备催化淀粉转化为环糊精的能力[14]。 在抗逆与防御机制方面,该菌含有与芽孢形成的相关基因(如Spo0A、SigE 等),成簇规律间隔短回文重复序列及其相关蛋白系统(clustered regularly interspaced short palindromic repeats and CRISPR-associated proteins system,CRISPR-Cas)用于抵御外源遗传元件,以及氧化应激相关基因(如SodA、KatE),共同增强其在胁迫环境中的生存能力[24];同时凝结魏茨曼氏菌还携带细菌素(如coagulin)合成相关基因簇,赋予其产生抗菌肽的潜力,为其在生物防腐领域应用奠定了基础[14]。
1.3.2 代谢特征
凝结魏茨曼氏菌的核心代谢特征可以概括为高效碳源转化能力、特异性功能产物合成及广泛的底物适配性,其代谢网络兼具工业生产价值与益生功能潜力,在碳水化合物发酵、功能酶分泌及次级代谢产物合成等方面展现出独特优势[8]。 在核心碳代谢方面,该菌以高效的同型乳酸发酵为特征[24]。 通过同型乳酸发酵途径将葡萄糖、乳糖和蔗糖等碳水化合物转化为光学纯度较高的L-( +)-乳酸,部分菌株在发酵过程中乙酸等副产物几乎不积累,显示出优良的乳酸生产选择性,这一特性使其在工业化生产L-乳酸方面具有重要应用价值[28]。 此外,该菌能分泌多种胞外酶,如淀粉酶、木聚糖酶和蛋白酶等,能够分解复杂碳水化合物,使其具备代谢木糖的能力,可通过磷酸酮解酶等途径实现转化,产酸率达60% ~98%,表明其在木质纤维素生物精炼中具备潜在应用价值[10]。
其次,凝结魏茨曼菌氏菌通过多途径调控网络维持极端pH、温度和氧分压环境下的代谢稳态。 在酸胁迫方面,发酵过程中乳酸积累导致环境pH 下降时,该菌可以通过F0F1-三磷酸腺苷酶(F0F1-adenosine triphosphatase,F0F1-ATPase)将胞内质子泵出,同时利用培养基中的碳酸盐缓冲体系中和胞外乳酸,维持胞内pH 稳定在6.0 ~6.5,避免酸性环境对酶活性与DNA 稳定性的影响[29]。 在温度适应方面,通过σ32因子调控热休克蛋白(heat shock protein,HSP)的表达,在30 ~70 ℃,HSP 可与变性蛋白结合并促进其复性,维持代谢酶的活性[30]。 凝结魏茨曼氏菌在不同氧分压环境下的代谢稳态机制涉及多方面的复杂调控,其通过精确感知氧气水平,动态调节呼吸链组分(如NADH/泛醌氧化还原酶)、发酵途径(如乳酸发酵)以及氧敏感型转录因子的表达,以维持细胞的能量平衡和氧化还原稳态[31]。 值得注意的是,生化鉴定证实,该菌不产硫化氢和靛基质等有害代谢物,保证了其用于食品工业的安全性[32],例如在低亚硝酸盐发酵香肠中,添加适量的凝结魏茨曼氏菌可以改善香肠的色度、硬度、黏附性和咀嚼性,并降低pH值、水分活度和亚硝酸盐含量[33]。
1.3.3 抗逆性及安全性评价
凝结魏茨曼氏菌具备优良的环境抗性,这一核心特性为其作为益生菌的应用提供了关键支撑。 在消化道环境耐受性方面,该菌展现出显著的耐酸与耐胆盐能力,可在pH 2. 0 ~3. 0 的胃酸环境以及3. 0 ~5.0 g/L 的胆汁盐质量浓度下存活,从而保障菌体在通过人体上消化道时维持较高存活率,例如胃部的酸性屏障和十二指肠的胆汁环境[34]。 其耐酸机制呈现多层面协同特性,芽孢衣中的蛋白质交联形成致密屏障,阻止质子穿透,同时芽孢核心内的吡啶二羧酸钙(dipicolinic acid-calcium complex,DPA-Ca2+ )复合物可以稳定DNA 与蛋白质构象,减少酸性环境对生物大分子的损伤[35];营养细胞通过F0F1-ATP 酶介导的质子泵出系统,将胞内质子主动转运至胞外,维持胞内pH 稳定在6.0 ~6.5 的适宜范围[24];另外胞内积累的相容性溶质(如甜菜碱、脯氨酸)可平衡渗透压,缓解酸性条件下的细胞脱水与蛋白变性。 临床模拟研究证实,这种多重防御机制确保了含有芽孢的制剂在经胃肠道转运后,进入小肠时的萌发率仍高达80%以上,确保了后续在肠道的定植与功能发挥[36]。在热耐受性方面,芽孢核心的极度脱水状态(含水量仅为营养细胞的20% ~30%)是耐热的基础,大幅降低高温下蛋白质变性与DNA 损伤的风险[29]。 此外,热休克蛋白作为分子伴侣,可识别并结合部分变性蛋白,促进正确复性,使菌株能耐受食品热加工工艺(如巴氏杀菌、制粒等)[7]。 在抗生素敏感性方面,对青霉素、红霉素等常用抗生素敏感,且生产菌株的最低抑菌浓度值低于安全阈值。 在安全性方面,该菌已被美国食品药品监督管理局认定为“公认安全”物质,并入选欧洲食品安全局的合格推定安全清单,确认其无致病性[28]。
2 凝结魏茨曼氏菌的功能活性及作用机制的研究进展
凝结魏茨曼氏菌通过菌体自身及其代谢产物的协同作用,在维持肠道健康方面展现出多方面的功能价值,主要体现在“抑制病原定植”与“重塑菌群结构”2 个方面[37]。 该菌能够通过竞争性定植、分泌抗菌物质和代谢产物,有效调节肠道菌群组成,以及通过增强上皮屏障功能和促进黏液分泌,修复和维护肠道物理与化学屏障;通过调节免疫细胞分化和炎症因子表达,实现精细的免疫平衡。 此外,其分泌的多种消化酶还能辅助营养物质分解,全面提升肠道的消化吸收能力;这些相互关联的机制共同构成了凝结魏茨曼氏菌发挥益生功能的多维网络[38-39]。
2.1 肠道菌群调节功能及机制
在抑菌机制方面,凝结魏茨曼氏菌通过占据肠道黏膜附着位点、形成空间位阻效应,与肠道上皮结合,竞争性抑制大肠杆菌、沙门氏菌等致病菌定植[40]。此外,凝结魏茨曼氏菌的核心产物L-乳酸通过降低肠道pH(4.5 ~5.5),直接抑制金黄色葡萄球菌等致病菌。 同时,乳酸作为信号分子,可以诱导其他有益菌表达乳酸转运体,从而促进其增殖。 凝结魏茨曼氏菌还可以产生凝固素和乳链菌素等抗菌肽,可特异性破坏致病菌细胞膜完整性,与乳酸形成协同抗菌效应,有效抑制病原菌增殖。 但是,不同菌株在定植能力与抑菌范围上表现出特异性功能[41],如凝结魏茨曼氏菌TQ33 可能具有更强的黏附与定植能力,其干预能够显著提升厚壁菌门中有益的乳杆菌属的相对丰度[42]。 凝结魏茨曼氏菌BCG44 则可能以其快速增殖和产酸能力见长,能有效抑制变形菌门(Proteobacteria)中机会性致病菌(如大肠杆菌)的过度生长,从而快速纠正菌群失衡状态[22]。
在重塑菌群结构方面,凝结魏茨曼氏菌能与双歧杆菌、乳杆菌等常驻有益菌建立交叉喂养关系,其分泌的L-乳酸作为关键的中间代谢产物,可诱导常驻有益菌(如双歧杆菌、乳杆菌)表达乳酸转运体,并作为碳源促进其生长,促进其增殖并优化菌群多样性[41]。 该菌能增加产短链脂肪酸(short-chain fatty acids,SCFAs)等其他代谢物的能力,参与优化菌群代谢网络,减少脂多糖等促炎物质生成,系统性改善肠道微环境稳态[38]。 研究表明,凝结魏茨曼氏菌BC99在临床干预中不仅能缓解便秘症状,还可显著调节菌群组成与代谢功能,体现了该菌在微生态调控中的整体性作用[43]。 凝结魏茨曼氏菌及其产生的后生元还会使肠杆菌科中的异杆菌属(Allobaculum)、鼠杆菌属(Muribaculum)和副萨特氏菌属(Parasutterella)细菌丰度的增加,从而导致粪杆菌属(Faecalibaculum)和脱硫弧菌属(Desulfovibrio)细菌丰度降低,这种肠道菌群组成的改变会进一步调节肝脏代谢通路,最终有助于降低肥胖发生率[44]。 凝结魏茨曼氏菌还能改变肠道菌群结构、提高菌群多样性,从而调节免疫系统,缓解卵清蛋白(ovalbumin,OVA)过敏症状。
2.1.1 促进有益菌增殖与肠道稳态构建
凝结魏茨曼氏菌通过协调机制为有益菌创造适宜生存环境,推动双歧杆菌、乳杆菌、丁酸梭菌等原生有益菌的定植、增殖及功能强化,形成稳定的肠道优势菌群结构[45]。 在定植位点竞争与微环境优化层面,凝结魏茨曼氏菌以芽孢形式抵达肠道后迅速萌发,通过菌体表面的菌毛、黏附素等结构与肠道上皮细胞的黏液层受体结合,优先占据肠黏膜附着位点,形成空间位阻,减少有益菌与其他微生物的定植竞争[9]。 同时,其兼性厌氧的代谢特性可快速消耗肠道内的氧气,将肠道局部氧分压降至1 mmHg 以下,为双歧杆菌、乳杆菌等严格厌氧菌的生长创造厌氧微环境,显著提升有益菌的定植效率。 例如,菌株凝结魏茨曼氏菌TQ33 通过高表达黏附相关基因(如fimA、slaA),黏附指数较普通菌株提升30%以上,可显著增加厚壁菌门中乳杆菌属、双歧杆菌属的相对丰度,使肠道有益菌占比提升25% ~40%[42]。
在交叉喂养与营养供给层面,凝结魏茨曼氏菌的代谢产物为有益菌提供了丰富的营养底物,形成高效的“交叉喂养”代谢网络。 其核心产物L-乳酸可作为丁酸梭菌、粪肠球菌等产SCFAs 菌的前体物质,通过LDH 催化转化为丁酸,使肠道丁酸产量大幅提升;乳酸还能诱导有益菌表达乳酸转运体(如lctP、lldP),增强有益菌对乳酸的利用效率,加速其增殖[46]。 此外,凝结魏茨曼氏菌分泌的淀粉酶、木聚糖酶等胞外酶,可将肠道内未被宿主消化的淀粉、膳食纤维等复杂碳水化合物降解为木寡糖、麦芽寡糖等益生元,这些寡糖无法被人体消化吸收,却能特异性促进双歧杆菌、乳杆菌的生长,进一步优化菌群结构[47]。
在信号分子调控与功能强化层面,凝结魏茨曼氏菌可分泌多种信号分子,调控有益菌的基因表达与功能活性。 其产生的乙酸、丙酸等短链脂肪酸可作为信号分子,激活有益菌中与定植、代谢相关的基因(如双歧杆菌的bifA、乳杆菌的luxS),提升有益菌的黏附能力与代谢效率[47]。 SCFAs 还能通过调节肠道上皮细胞的紧密连接蛋白(如occludin、zo-1)表达,增强肠道屏障功能,为有益菌的稳定定植提供物理保障[48]。不同菌株的促有益菌特性存在显著差异;菌株凝结魏茨曼氏菌BCG44 通过高效产酸能力快速优化肠道pH 环境,促进双歧杆菌增殖[22];菌株凝结魏茨曼氏菌BC99 则通过分泌特异性蛋白因子,增强丁酸梭菌的丁酸合成能力,在缓解便秘、改善肠道炎症中发挥协同作用[15]。
2.1.2 抑制有害菌的定植机制与致病活性
凝结魏茨曼氏菌在肠道定植过程中,不仅能释放肽聚糖、磷壁酸等成分,经转运代谢后参与“肠、脑、轴”的双向调控[49],还可通过代谢产物分泌、营养竞争、生物膜破坏等多重靶向机制,精准抑制大肠杆菌、沙门氏菌、金黄色葡萄球菌、变形菌门等有害菌的生长、定植及干预致病过程,降低肠道感染与炎症的发生风险[47](图2)。 有机酸代谢抑制是其发挥抑菌作用的首要机制。 凝结魏茨曼氏菌具备高效的同型乳酸发酵特性,对数期产酸速率达0.12 g/(L·h),且生成的L-乳酸光学纯度≥99%,乳酸的快速积累可将肠腔局部pH 值迅速降至4.5 ~5.5[50]。 这种酸性微环境可显著抑制致病菌的酶活性与代谢过程;例如,金黄色葡萄球菌在pH≤5.0 时生长速率快速下降,大肠杆菌的鞭毛运动能力丧失,定植能力降低[50]。 同时,乳酸可穿透致病菌细胞膜,干扰胞内pH 稳态,破坏蛋白质与核酸的结构稳定性,导致致病菌凋亡[30]。

图2 促进有益菌增殖与肠道稳态构建机制图
Fig.2 Mechanism of promoting the proliferation of beneficial bacteria and establishing intestinal homeostasis
在广谱抗菌物质分泌方面,其产生的凝固素、乳链菌素等抗菌肽,可特异性识别致病菌细胞膜上的受体蛋白,通过形成跨膜孔道破坏细胞膜完整性,导致胞内物质外泄而死亡[51],对革兰氏阳性菌的最小抑菌浓度可达0.1 ~1.0 μg/mL。 同时,菌株还能分泌脂肽类物质,这类物质具有两亲性结构,无需受体即可直接插入致病菌细胞膜的磷脂双分子层,形成不稳定的脂质通道,对革兰氏阳性菌、革兰氏阴性菌及真菌有抑制作用,且因作用于保守的膜结构,不易诱导致病菌产生耐药性[52]。 例如,凝结魏茨曼氏菌RY237 分泌的脂肽对多重耐药大肠杆菌的抑制率达75%,显著优于传统抗菌肽。 此外,代谢副产物过氧化氢与乙酸的协同作用进一步增强了对病原菌的抑制或杀灭效应[53-54]。
针对顽固性致病菌,凝结魏茨曼氏菌还表现出卓越的生态竞争与生物膜阻断能力。 凭借高葡萄糖利用率,该菌通过快速掠夺环境中的速效碳源与氮源,有效限制致病菌的能量供给。 同时,其分泌的淀粉酶、蛋白酶等胞外酶可降解致病菌生物膜的主要成分(如胞外多糖、蛋白质),破坏生物膜的结构完整性,使隐藏在生物膜内的致病菌暴露于抗菌物质与宿主免疫细胞的作用下,显著降低其致病能力[21]。 研究表明,凝结魏茨曼氏菌的胞外酶可使沙门氏菌生物膜的形成率下降60%,生物膜厚度减少45%,有效抑制致病菌的群体感应与耐药基因传递[55]。 在菌株特异性抑菌效应方面,不同凝结魏茨曼氏菌菌株的抑菌谱与抑菌强度存在显著差异。 例如,凝结魏茨曼氏菌TQ33 对革兰氏阳性菌(如金黄色葡萄球菌、李斯特菌)的抑制作用更突出,其分泌的抗菌肽对李斯特菌的最低抑菌浓度低至0.08 μg/mL[42];凝结魏茨曼氏菌BCG44 则对变形菌门中的机会致病菌(如大肠杆菌、克雷伯氏菌)具有强效抑制作用,可使肠道内变形菌门丰度大幅降低;而凝结魏茨曼氏菌BC99 通过“产酸+抗菌肽+ 脂肽”的复合抑菌机制,对多种致病菌均表现出显著抑制效果,在临床干预中可使便秘患者肠道内有害菌占比下降40%以上,肠道炎症因子水平显著降低[22]。
2.2 免疫调节双向调控机制
凝结魏茨曼氏菌通过“模式识别、代谢重塑、抗氧化防御” 的协同调控,构建肠道免疫稳态网络(图3)。 凝结魏茨曼氏菌细胞壁的肽聚糖与脂磷壁酸作为核心病原体相关分子模式(pathogen-associated molecular patterns,PAMPs),可被肠道黏膜固有层免疫细胞表面的Toll 样受体2 特异性识别,启动髓样分化因子88 依赖型信号通路[52]。 该通路通过白细胞介素-1 受体相关激酶1/4 磷酸化激活肿瘤坏死因子受体相关因子6,进而调控核因子-κB 信号通路:一方面促进树突状细胞成熟,上调主要组织相容性复合体Ⅱ类分子(major histocompatibility complex class Ⅱ,MHC-Ⅱ)、分化簇80/86(cluster of differentiation 80/86,CD80/CD86)等共刺激分子表达,增强抗原呈递效率,提升机体抗感染能力;另一方面通过精准调控核因子-κB 核转录活性,避免促炎因子过度释放,仅适度诱导IL-6、IL-1β 等细胞因子分泌,为适应性免疫激活提供“启动信号”[8]。
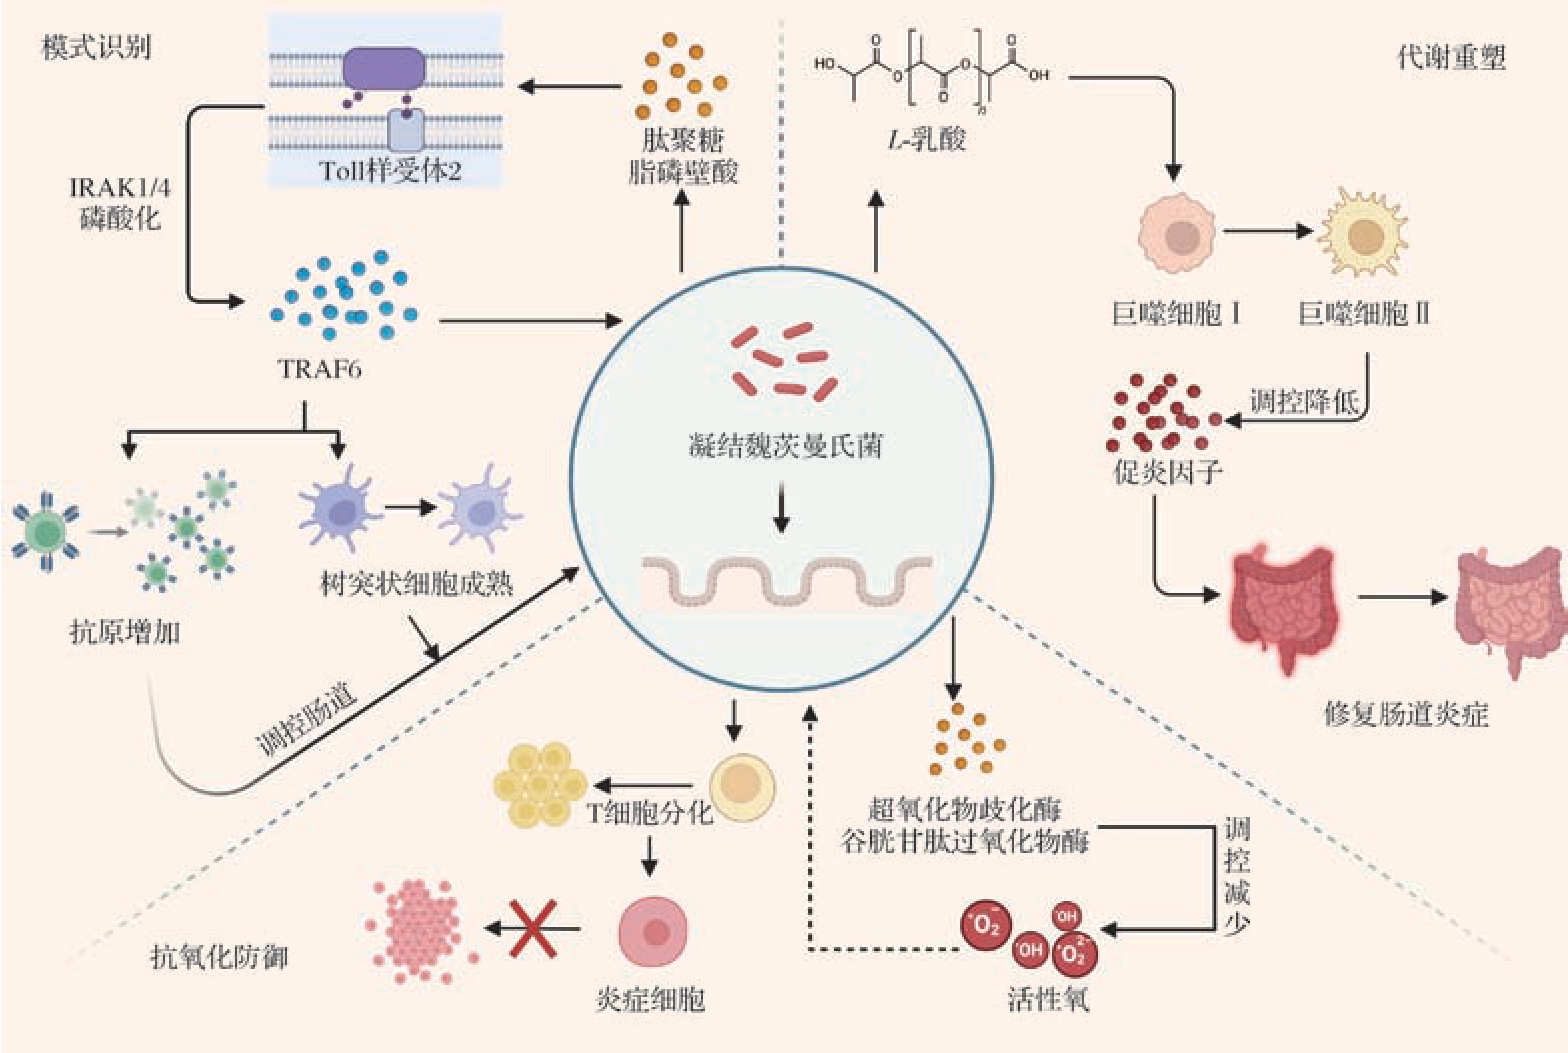
图3 免疫调节调控机制图
Fig.3 Mechanism of immunomodulation
在T 细胞亚群平衡与过敏干预方面,凝结魏茨曼氏菌展现出优良的调控潜力[56]。 研究证实,菌株凝结魏茨曼氏菌BCG44 可显著提升脾脏中CD4+Foxp3+调节性T 细胞(cluster of differentiation 4 andforkhead box P3 positive regulatory T cells,Treg)的比例,并抑制致炎性细胞的分化,有效纠正Treg/Th17免疫失衡[22]。 Fu 等[53] 在过敏原虾原肌球蛋白(shrimp tropomyosin,ST)诱导的小鼠过敏模型中发现,该菌通过重塑Treg/Th17/Th2 细胞平衡,显著缓解了食物过敏反应。 研究进一步揭示,该菌及其发酵上清液不仅能刺激细胞产生适度的免疫激活反应,还能协同改善肠道功能失调,显示出“菌体、代谢物”的双重免疫调节活性[41];此外,菌株具备抗氧化防御体系。 其分泌的超氧化物歧化酶(superoxide dismutase,SOD)与谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)可清除炎症微环境中的活性氧(reactive oxygen species,ROS),抑制ROS 介导的NLRP3 炎症小体激活,减少Caspase-1 依赖的IL-1β 成熟释放,进一步强化抗炎效应。
代谢产物的表观遗传调控是该菌免疫调节的核心。 其代谢产物L-乳酸通过双重机制调控巨噬细胞极化,作为G 蛋白偶联受体81(G protein-coupled receptor 81,GPR81)的特异性配体,结合后抑制胞内环磷酸腺苷(cyclic adenosine monophosphate,cAMP)水平,阻断磷脂酰肌醇3-激酶/蛋白激酶B(phosphatidylinositol 3-kinase/protein kinase B,PI3K/Akt)通路活化,减少TNF-α、IL-1β 等促炎因子转录[52],目前关于凝结魏茨曼氏菌代谢产生的L-乳酸介导组蛋白乳酸化并调控巨噬细胞极化的研究仍处于探索阶段,体内效应仍需更多动物实验和临床研究验证。 这种免疫表型转变不仅能减轻局部组织炎症,还能通过M2型巨噬细胞分泌的TGF-β 诱导成纤维细胞活化,修复肠道黏膜损伤。 此外,凝结魏茨曼氏菌可以通过调节色氨酸代谢衍生物和γ-氨基丁酸的合成以及代谢SCFAs,通过肠道、大脑双向调控,改善情绪相关神经行为异常。 临床试验进一步证实,菌株凝结魏茨曼氏菌BC99 干预可显著降低酒精性肝病患者血清超敏C 反应蛋白(high-sensitivity C-reactive protein,hs-CRP)、TNF-α 与IL-6 水平,并上调抗炎因子IL-10 水平,验证该菌在人体水平上优异的系统性免疫调节功效[15]。
2.3 消化辅助与代谢调控效应
2.3.1 消化酶的分泌与辅助功能
凝结魏茨曼氏菌通过其丰富的酶系发挥重要的消化辅助功能(图4)。 该菌不仅能分泌常规的淀粉酶、蛋白酶、脂肪酶,还具有合成α/β-半乳糖苷酶、木聚糖酶等非淀粉多糖酶的特异性潜能。 这些酶类在肠道中直接参与营养物质的分解过程,且其表达受底物诱导调控[11]。 如乳糖可显著上调β-半乳糖苷酶的表达,这一机制为缓解乳糖不耐受提供了分子基础。不同菌株展现出特异的产酶谱系,例如,菌株凝结魏茨曼氏菌RY237 高产β-半乳糖苷酶,而菌株凝结魏茨曼氏菌RCS3 则以合成纤溶酶为特征。 在优化条件下,部分菌株的淀粉酶活性可达6 700 U/g,显示出其强大的酶合成能力。 这些功能酶系在肠道微环境中发挥多重生理效应,淀粉酶和蛋白酶将大分子营养物质降解为易吸收的单糖和氨基酸,直接提升营养利用率。 α-半乳糖苷酶通过降解水苏糖等抗营养因子减少肠道产气;更为重要的是,木聚糖酶分解膳食纤维产生的寡糖可作为益生元促进有益菌增殖[57]。 这些酶解产物同时为菌体自身代谢提供底物,形成酶解、代谢与益生的协同循环,系统性地增强宿主的消化吸收与肠道稳态[43]。 此外,蛋白酶的分泌还受氧气浓度与芽孢形成周期的时空调控,这种对环境因子响应的灵活性,进一步确立了其在复杂肠道环境中的生存与功能优势[24]。 其酶分泌机制的多样性(如底物诱导、氧浓度调控)和功能的广谱性(消化、抑菌、抗炎等)使其成为食品工业和临床应用中的理想益生菌[41]。

图4 消化辅助与代谢调控效益机制图
Fig.4 Mechanism of digestive assistance and metabolic regulation
2.3.2 代谢紊乱的干预作用
凝结魏茨曼氏菌通过肠道菌群调控、功能性代谢产物分泌和宿主信号通路激活的协同机制[40],在血糖稳态维持、血脂代谢调节、肥胖干预及非酒精性脂肪肝等代谢相关疾病改善中展现出明确潜力,其作用具有菌株特异性与机制多样性的特点。 在血糖代谢调控方面,该菌通过多重路径改善胰岛素抵抗、降低血糖波动。 该菌可通过代谢产生的短链脂肪酸可作为信号分子,激活肠道上皮细胞的G 蛋白偶联受体41 和43(GPR41、GPR43),抑制肝脏糖异生相关基因的表达,减少肝脏葡萄糖输出,同时促进骨骼肌、脂肪组织对胰岛素的敏感性,提升葡萄糖摄取效率[44]。临床研究显示,给Ⅱ型糖尿病患者补充凝结魏茨曼氏菌BC99 益生菌制剂12 周后,空腹血糖、糖化血红蛋白分别降低15. 3 mmol/L 和12. 7 mmol/L,胰岛素抵抗指数显著下降,且未出现明显不良反应[58]。 另一方面,该菌还可通过调节嗜黏蛋白阿克曼菌(Akkermansia muciniphila)等有益菌丰度,修复肠道黏液屏障,减少脂多糖入血引发的慢性炎症,从根源上缓解慢性低度炎症诱导的胰岛素抵抗[44]。临床试验表明,部分菌株(如凝结魏茨曼氏菌TQ33)还能分泌α-葡萄糖苷酶,从而抑制剂样代谢产物的产生,延缓肠道对淀粉、蔗糖等碳水化合物的消化吸收,降低餐后血糖峰值,为血糖控制提供辅助支持。
在血脂代谢方面,凝结魏茨曼氏菌通过干预胆固醇合成与排泄、调节脂质转运相关基因表达,改善血脂紊乱[52]。 其代谢产生的乳酸可降低肠道pH 值,促进胆汁酸的溶解与排泄,而胆汁酸由胆固醇合成,大量排泄可推动肝脏胆固醇向胆汁酸转化,减少血清总胆固醇和低密度脂蛋白胆固醇水平[9]。 同时,该菌可上调宿主肝脏中胆固醇7α-羟化酶的表达,该酶是胆汁酸合成的关键限速酶,其活性增强可加速胆固醇代谢;此外,还能抑制乙酰辅酶A 羧化酶、脂肪酸合成酶等脂质合成相关基因的表达,减少甘油三酯在肝脏和脂肪组织中的积累[33]。 动物实验证实,给高脂饮食诱导的高脂血症小鼠补充凝结魏茨曼氏菌CGMCC9951 菌株8 周后,血清总胆固醇和低密度脂蛋白胆固醇含量分别降低23.6、31.2、28.9 mmol/L,高密度脂蛋白胆固醇升高19.7 mmol/L,同时肝脏脂肪变性程度显著减轻[12]。
在肥胖干预与脂肪代谢调节中,凝结魏茨曼氏菌主要通过缓解脂肪组织炎症、调节能量代谢平衡发挥作用。 肥胖状态下,白色脂肪组织中M1 型巨噬细胞浸润增加,释放大量促炎因子(TNF-α、IL-6),加剧代谢紊乱;而该菌代谢产生的乳酸可诱导组蛋白乳酸化修饰,推动巨噬细胞由M1 型向M2 型转化,上调抗炎因子IL-10 的表达,减轻脂肪组织慢性炎症[44]。 同时,SCFAs 可通过肠道、大脑轴传递饱腹感信号,抑制下丘脑食欲中枢的神经肽Y 表达,减少食物摄入量;还能激活棕色脂肪组织中的产热相关基因(如uncoupling protein 1),促进白色脂肪向棕色脂肪转化,提高能量消耗效率[13]。 研究发现,补充凝结魏茨曼氏菌T4 菌株可使高脂饮食诱导的肥胖小鼠体重降低,同时改善葡萄糖耐量和胰岛素敏感性[44]。
针对非酒精性脂肪肝(nonalcoholic fatty liver disease,NAFLD),凝结魏茨曼氏菌通过“肠道、肝脏轴”发挥保护作用。 该菌定植肠道后,可抑制肠道内有害菌(如脱硫弧菌属)的增殖,减少这类菌产生的内毒素入血,从而降低肝脏的炎症浸润和氧化应激损伤[12]。 其分泌的SOD、GSH-Px 等抗氧化代谢产物,可清除肝脏细胞内的活性氧,减轻脂质过氧化对肝细胞的损伤,抑制肝纤维化相关基因(如transforming growth factor-β1 和collagen type I α 1 chain)的表达[12]。临床前研究显示,凝结魏茨曼氏菌BC99 菌株干预可使NAFLD 模型小鼠的肝脏脂肪含量降低,转氨酶水平恢复至接近正常水平,肝组织炎症评分显著下降[15]。 此外,该菌在代谢综合征相关的其他症状改善中也有积极作用。 例如,对于绝经后女性因激素水平变化导致的代谢紊乱,补充凝结魏茨曼氏菌可通过调节肠道菌群、改善胰岛素敏感性,缓解体重增加、血脂异常等问题[33];在运动人群中,其与蛋白质补充剂协同作用,可提升支链氨基酸的吸收效率,减少肌肉蛋白分解,同时调节能量代谢,缓解运动后疲劳,改善身体成分[36,58]。 不同菌株的代谢紊乱干预特性存在差异,如凝结魏茨曼氏菌BC99 菌株在血糖、血脂协同调节中表现突出,凝结魏茨曼氏菌CGMCC9951 菌株更侧重肝脏脂质代谢改善,这种特异性为不同类型代谢紊乱的精准干预提供了可能。
3 产业化应用场景与相关研究进展
3.1 食品工业领域
在食品工业中,凝结魏茨曼氏菌凭借其优异的发酵特性、益生功能及生物防腐能力,展现出巨大的应用价值。 芽孢外壁是由厚肽聚糖层、皮层和芽孢衣组成的多层致密网络,配合核心内的高浓度DPA-Ca2+复合物,有效维持了DNA 和蛋白质的构象稳定[15]。实验结果表明,其芽孢在pH 值为2.0 的模拟胃液中处理60 min 后存活率仍高达86%,显著优于传统益生菌(双歧杆菌5.2%、乳酸杆菌5.5%);同时能耐受100 ℃高温加工,确保了其在软糖、烘焙食品及热饮等功能性产品中的货架期活菌数维持在107 CFU/g以上[48]。 其次,在发酵与功能改良方面,该菌代谢产生的L-乳酸赋予酸奶、奶酪及植物基食品(如豆奶、燕麦奶)特征性酸味,降低环境pH 值,并协同分泌的抗菌肽有效抑制李斯特菌、金黄色葡萄球菌等食源性致病菌[41]。 Huang 等[30]研究表明,利用凝结魏茨曼氏菌PR06 发酵乌龙茶强化米粉,可修饰淀粉结构,增强面条质构特性并降低烹饪损失。 此外,Guo等[40]发现凝结魏茨曼氏菌BC99 与蛋白质补充剂协同作用,不仅提升蛋白质消化效率,还能通过调节炎症因子与肠道菌群,有效缓解运动疲劳并增强耐力。在食品工业领域未来可重点解析不同食品各种条件下的芽孢萌发精准调控机制,建立适配多品类食品的芽孢稳态化技术;通过食品级基因编辑技术,定向强化菌株功能酶系、抗菌肽等益生相关功能表达;同时系统评估加工、复配、贮藏全链条的抗性基因转移风险,完善食品级菌株应用规范,促进功能性食品合规化、规模化开发。
3.2 畜牧养殖领域
凝结魏茨曼氏菌作为绿色饲料添加剂在畜牧养殖中展现出显著的抗生素替代潜力。 其芽孢结构能耐受90 ℃,30 min 内活性几乎不下降,因此能保证在饲料制粒工艺中的存活率,确保产品有效性[36]。 在家禽养殖中,基础粮中该菌添加量为106 CFU/g 即可显著改善生产性能,使产蛋率提升了4.04%、破蛋率降低11.9%、沙蛋壳率下降了40.94%,同时提升蛋品品质[59]。 在水产养殖方面,添加0.05 g/kg 的凝结魏茨曼氏菌(活菌含量1 ×10¹⁰ CFU/g)可促进大口黑鲈幼鱼生长,并通过调节肠道菌群、增强免疫功能及减轻肝脏损伤等多重途径改善养殖效益[2,60]。 这些特性使其成为满足无抗养殖需求的理想微生物制剂[61]。
3.3 医药健康领域
在医药健康领域,该菌不仅用于药物开发,其相关生物材料在新型递送系统中也发挥关键作用。 一方面,功能性微生物微胶囊技术是当前研究热点。 该菌多糖因其无毒、优异的生物相容性和生物可降解性,被广泛用作益生菌微胶囊的壁材,通过形成物理屏障保护益生菌[39,47,62],从而保证胶囊的定点释放。海藻酸盐是应用最广泛的多糖载体,其通过内部凝胶化方法形成的凝胶珠能够有效包埋益生菌[51,63]。 研究显示,将短乳杆菌(Lactobacillus salivarious Li01)包埋在海藻酸盐微珠中,能显著提高其在货架期贮存和胃肠道转运过程中的存活率[10,63],因此对凝结魏茨曼氏菌进行包埋加工也是一种较有潜力的研究和发展方向。 在临床干预中,该菌被探索用于治疗IBS 及相关代谢综合征。 与菊粉或茶多酚等益生元复配,可通过协同增效机制进一步改善肠道微环境,具有开发成为特殊医疗食品或活菌药物的潜力[13,33,57-58]。 接下来的研究可以深入解析畜禽不同肠段、不同生理阶段下芽孢萌发与定植的动态规律,建立基于养殖品种与生长周期的精准施用方案;通过基因工程定向选育养殖专用菌株,强化抗逆、营养降解与免疫调控功能;系统评估养殖全链条的抗性基因转移与生态安全风险,建立专用菌株安全评价体系,全面支撑绿色无抗养殖的产业升级。
3.4 生物制造领域
凝结魏茨曼氏菌在生物工业领域中,作为高效的微生物细胞工厂,展现出显著的应用潜力,尤其是在生物基化学品的绿色制造方面。 凝结魏茨曼氏菌BNCC168437 具备高效转化玉米芯(廉价生物质)为L-乳酸的能力,耐抑制剂特性适配实际生物质水解液发酵场景[64]。 L-乳酸是合成生物可降解塑料PLA 的关键单体,为其在包装和材料工业中的规模化应用提供了可持续的路径。 除此之外,凝结魏茨曼氏菌还能够分泌多种具有高工业价值的酶类,如耐热淀粉酶、热稳定脂肪酶、木聚糖酶、蛋白酶及环糊精葡萄糖基转移酶等,这类酶类具有耐温、耐酸、催化效率高等特性,在食品工业(淀粉深加工、乳制品发酵)、纺织工业(织物退浆、脱脂)、洗涤剂工业(添加耐热脂肪酶提升去污能力)、生物化工(环糊精合成、木质纤维素降解)等领域展现出广阔的应用前景,部分耐热淀粉酶菌株已实现实验室规模的高效表达,为工业化酶制剂生产提供了新的微生物菌株资源[24]。 未来可深入解析工业胁迫环境下菌株的抗逆机制与代谢稳态调控网络,优化连续发酵体系的生产效率;通过系统代谢工程改造,强化目标产物合成通量,打造多功能绿色生物制造底盘细胞;同时系统评估工程菌株的抗性基因转移与环境泄漏风险,建立工业级生物安全防控体系。
4 结论与展望
凝结魏茨曼氏菌作为兼具芽孢形成与乳酸发酵特性的益生菌,凭借优异抗逆性、丰富代谢功能及广泛产业适配性,在食品、畜牧、医药、生物制造等领域展现出巨大的潜在应用价值,当前多数应用仍处于实验室研发和小试阶段,规模化产业化应用仍需突破多项关键技术,其调节肠道菌群、平衡免疫应答、辅助营养消化的多元功能,为健康与绿色产业提供了重要支撑。 当前对该菌株的研究仍面临关键瓶颈,如菌株功能异质性显著却缺乏统一评价标准,代谢产物调控宿主生理的分子机制尚未完全阐明,临床疗效证据与精准应用方案不足,递送系统稳定性及规模化制备工艺有待优化等。 未来需聚焦多组学技术定向选育高效菌株,借助前沿手段解析功能机制,推进大样本临床试验与场景化应用参数优化,开发新型靶向递送系统,建立行业标准规范,实现从基础研究到产业化的全链条突破,助力健康中国战略与绿色生物技术发展。
[1] Luo J Y, Jia M J, Yang X, et al. Interaction between lactic acid bacteria and Polygonatum sibiricum saponins and its application to microencapsulated co-delivery[J]. Food Chemistry, 2024, 448:138959.
[2] Xie A J, Zhao S S, Liu Z F, et al. Polysaccharides, proteins, and their complex as microencapsulation carriers for delivery of probiotics:a review on carrier types and encapsulation techniques[J]. International Journal of Biological Macromolecules, 2023, 242:124784.
[3] 孔素芬, 朱明明, 朱建国, 等. 凝结魏茨曼氏菌BC66 的筛选、鉴定及特性研究[J]. 食品工业科技,2023,44(15):134 -142.Kong S F, Zhu M M, Zhu J G, et al. Screening, identification and biological characterization of Weizmannia coagulans BC66[J]. Science and Technology of Food Industry, 2023, 44(15):134 -142.
[4] 倪伟超. 凝结魏茨曼氏菌的研究进展[J]. 中国食品工业, 2024(4):174 -176.Ni W C. Research progress of Weitzmann coagulans[J]. China Food Industry, 2024(4):174 -176.
[5] Golic' N, Dokic' J, Tolinacˇki M, et al. Next-generation probiotics:health-promoting bacteria of the human gut[J]. Arhiv Za Farmaciju, 2023, 73(6):515 -534.
[6] Singh J K, Devi P B, Reddy G B, et al. Biosynthesis, classification, properties, and applications of Weissella bacteriocins[J].Frontiers in Microbiology, 2024, 15:1406904.
[7] Bressuire-Isoard C, Broussolle V, Carlin F. Sporulation environment influences spore properties in Bacillus:evidence and insights on underlying molecular and physiological mechanisms[J]. FEMS Microbiology Reviews, 2018, 42(5):614 -626.
[8] Zhang S Q, Li P L, Lee S, et al. Weizmannia coagulans:an ideal probiotic for gut health[J]. Food Science and Human Wellness,2024, 13(1):16 -26.
[9] Abhari K, Shekarforoush S S, Sajedianfard J, et al. The effects of probiotic, prebiotic and synbiotic diets containing Bacillus coagulans and inulin on rat intestinal microbiota[J]. Iranian Journal of Veterinary Research, 2015,16(3):267 -273.
[10] Song L, Xu H T, Chen C F, et al. Supramolecular self-assembly for probiotic delivery in food system:responsive strategies, multifunctional carriers, future perspectives[J]. Trends in Food Science & Technology, 2025, 164:105266.
[11] 夏紫嫣, 郝占西, 韩迪, 等. 凝结魏茨曼氏菌BC-G44 对大鼠抗生素相关性腹泻结肠菌群结构、屏障功能及炎症反应的影响[J]. 微生物学报, 2025, 65(3):1162 -1180.Xia Z Y, Hao Z X, Han D, et al. Weizmannia coagulans BC-G44 regulates intestinal microbiota structure, barrier function, and inflammatory response in the colon of the rat model of antibiotic-associated diarrhea[J]. Acta Microbiologica Sinica, 2025, 65(3):1162 -1180.
[12] 李成, 吴影, 郭明涵, 等. 凝结魏茨曼氏菌CGMCC 9951 对酒精性肝损伤小鼠肠道菌群的调节作用[J]. 食品工业科技,2025, 46(23):212 -220.Li C, Wu Y, Guo M H, et al. Regulatory effect of Weizmannia coagulans CGMCC 9951 on intestinal flora in mice with alcoholic liver disease[J]. Science and Technology of Food Industry, 2025,46(23):212 -220.
[13] Fijan S, Fijan T, Connil N. Overview of probiotic strains of Weizmannia coagulans, previously known as Bacillus coagulans, as food supplements and their use in human health[J]. Applied Microbiology, 2023, 3(3):935 -947.
[14] Maresca E, Aulitto M, Contursi P. Harnessing the dual nature of Bacillus (Weizmannia) coagulans for sustainable production of biomaterials and development of functional food[J]. Microbial Biotechnology, 2024, 17(4):e14449.
[15] Zhai S R, Gao Y Y, Jiang Y R, et al. Weizmannia coagulans BC99 affects valeric acid production via regulating gut microbiota to ameliorate inflammation and oxidative stress responses in Helicobacter pylori mice[J]. Journal of Food Science, 2024, 89(12):9985 -10002.
[16] Kallur R K, Madapati S, Mathur A, et al. The role of Weizmannia(Bacillus) coagulans LMG S-31876 in treating IBS-diarrhea[J].Frontiers in Nutrition, 2023, 10:1310462.
[17] Wang Z B, Guo Z T, Liu L B, et al. Potential probiotic Weizmannia coagulans WC10 improved antibiotic-associated diarrhea in mice by regulating the gut microbiota and metabolic homeostasis[J]. Probiotics and Antimicrobial Proteins,2025,17(5):3451 -3467.
[18] Zhang Y T, Jiang Y B, Zhao J S, et al. Weizmannia coagulans extracellular proteins reduce skin acne by inhibiting pathogenic bacteria and regulating TLR2/TRAF6-mediated NF-κB and MAPKs signaling pathways[J]. Probiotics and Antimicrobial Proteins, 2025,17(2):705 -720.
[19] Kaushik G, Patel M. Draft genome sequence of weizmannia coagulans MB BCM9, a stable spore-forming probiotic[J]. Microbiology Resource Announcements, 2023, 12(3):e0121222.
[20] Su F, Yu B, Sun J B, et al. Genome sequence of the thermophilic strain Bacillus coagulans 2-6, an efficient producer of high-opticalpurity L-lactic acid[J]. Journal of Bacteriology, 2011, 193(17):4563 -4564.
[21] Zhang Y M, Gandhi N N. Complete genomic sequence of Bacillus coagulans strain JBI-YZ6. 3:a natural spore-forming isolate from food-grade tapioca starch[J]. Microbiology Resource Announcements, 2023, 12(1):e0100322.
[22] Xu Y F, Wang Y, Song T, et al. Immune-enhancing effect of Weizmannia coagulans BCG44 and its supernatant on cyclophosphamide-induced immunosuppressed mice and RAW264.7 cells via the modulation of the gut microbiota[J]. Food & Function, 2024,15(21):10679 -10697.
[23] Pamueangmun P, Abdullahi A D, Kabir M H, et al. Lignocellulose degrading Weizmannia coagulans capable of enantiomeric Llactic acid production via consolidated bioprocessing[J]. Fermentation, 2023, 9(8):761.
[24] Aulitto M, Martinez-Alvarez L, Fiorentino G, et al. A comparative analysis of Weizmannia coagulans genomes unravels the genetic potential for biotechnological applications[J]. International Journal of Molecular Sciences, 2022, 23(6):3135.
[25] Cabrera M N, Vila E, Liguori A, et al. Purification of xylosaccharides from Eucalyptus residues for l-lactic acid production by Weizmannia coagulans [J]. Biofuels, Bioproducts and Biorefining,2024, 18(6):1902 -1916.
[26] Yu H, Kong Q, Wang M R, et al. Improved viability of probiotics by encapsulation in chickpea protein matrix during simulated gastrointestinal digestion by succinylated modification[J]. International Journal of Biological Macromolecules, 2024, 260:129614.
[27] Peng S D, Guo C Q, Zhang X Y, et al. Kinetic study of the thermal inactivation of Weizmannia coagulans during food thermal processing[J]. Heliyon, 2024, 10(17):e36977.
[28] Chen S X, Zeng H, Qiu H L, et al. Regulation mechanism of nitrite degradation in Lactobacillus plantarum WU14 mediated by Fnr[J]. Archives of Microbiology, 2024, 206(12):455.
[29] Wu Y, Wu Z Y, Gao Y Y, et al. Comprehensive genomic analysis and evaluation of in vivo and in vitro safety of Heyndrickxia coagulans BC99[J]. Scientific Reports, 2024, 14:26602.
[30] Huang J Q, Lai P F, Xiang L H, et al. Influences of Weizmannia coagulans PR06 fermentation on texture, cooking quality and starch digestibility of oolong tea-fortified rice noodles[J]. Foods, 2024,13(17):2673.
[31] Zhang Y M, Overbeck T J, Skebba V L P, et al. Genomic and phenotypic safety assessment of probiotic Bacillus coagulans strain JBI-YZ6.3[J]. Probiotics and Antimicrobial Proteins, 2025, 17(5):3440 -3450.
[32] Munir A, Javed G A, Javed S, et al. Levilactobacillus brevis from carnivores can ameliorate hypercholesterolemia:in vitro and in vivo mechanistic evidence[J]. Journal of Applied Microbiology, 2022,133(3):1725 -1742.
[33] Majeed M, Majeed S, Arumugam S, et al. Comparative evaluation for thermostability and gastrointestinal survival of probiotic Bacillus coagulans MTCC 5856[J]. Bioscience, Biotechnology, and Biochemistry, 2021, 85(4):962 -971.
[34] 曹江.凝结魏茨曼氏菌对宿主肠道功能的调节作用及其差异性解析[D].无锡:江南大学, 2022.Cao J. The regulatory effects of clostridium Weitzmanii on host intestinal function and analysis of its differences [D]. Wuxi:Jiangnan University, 2022.
[35] Gao Y X, Wang X, Xue C H, et al. Latest developments in foodgrade delivery systems for probiotics:a systematic review[J]. Critical Reviews in Food Science and Nutrition, 2023, 63(20):4371-4388.
[36] Lalarukh U, Hussain S M, Ali S, et al. Microencapsulation:an innovative technology in modern science[J]. Polymers for Advanced Technologies, 2025, 36(1). DOI:10.1002/pat.70066.
[37] Suwanangul S, Jaichakan P, Narkprasom N, et al. Innovative insights for establishing a synbiotic relationship with Bacillus coagulans:viability, bioactivity, and in vitro-simulated gastrointestinal digestion[J]. Foods, 2023, 12(19):3692.
[38] 贾辰浩, 袁佐云, 杨娟, 等. 凝结魏茨曼氏菌的菌种特性及生产应用现状[J]. 饲料工业, 2024(9):125 -132.Jia C H, Yuan Z Y, Yang J, et al. Strain property and production application status of Weizmannia coagulans[J]. Feed Industry,2024(9):125 -132.
[39] 肖瑞峰, 闫艳华, 宗志友, 等. 凝结芽孢杆菌TQ33 产抗疫霉物质特性研究[J]. 天津科技大学学报, 2011, 26(6):1 -6.Xiao R F, Yan Y H, Zong Z Y, et al. Activity against Phytophthora drechsleri tucker of Bacillus coagulans TQ33 and the properties of bioactive substance[J]. Journal of Tianjing University of Science & Technology, 2011, 26(6):1 -6.
[40] Guo M H, Zhao L N, Cao L, et al. Weizmannia coagulans BC99:a novel adjunct to protein supplementation for enhancing exercise endurance and reducing fatigue[J]. Foods, 2025, 14(5):801.
[41] Hashemnia S M R, Meshkani R, Zamani-Garmsiri F, et al. Amelioration of obesity-induced white adipose tissue inflammation by Bacillus coagulans T4 in a high-fat diet-induced obese murine model[J]. Life Sciences, 2023, 314:121286.
[42] 伍亚龙, 杨博文, 吕鹏军, 等. 凝结魏茨曼氏菌高密度培养条件优化[J]. 中国酿造, 2024, 43(8):230 -236.Wu Y L, Yang B W, Lyu P J, et al. Optimization of high-density culture conditions for Weizmannia coagulans[J]. China Brewing,2024, 43(8):230 -236.
[43] Liu J Y, Li X B, Zhang X P, et al. Gut lumen-targeted oral delivery system for bioactive agents to regulate gut microbiome[J].Journal of Future Foods, 2022, 2(4):307 -325.
[44] Lin Q Q, Si Y X, Zhou F S, et al. Advances in polysaccharides for probiotic delivery:Properties, methods, and applications[J].Carbohydrate Polymers, 2024, 323:121414.
[45] Zhu D, Chen S N, Mei X H, et al. Advances in the delivery systems for improving the processing stability, storage stability and in vivo survival rate of probiotics[J]. Food Science, 2023, 44(21):1 -13.
[46] Zhao X X, Wang W Y, Zeng X L, et al. Klebicin E, a pore-forming bacteriocin of Klebsiella pneumoniae, exploits the porin OmpC and the Ton system for translocation[J]. Journal of Biological Chemistry, 2024, 300(3):105694.
[47] Tuteja M, Choudhary A, Rohilla P, et al. Tapping the potential of probiotics:an insight on probiotic delivery systems, their quantification, and assessment[J]. Journal of Pharmaceutical Technology,Research and Management, 2023, 11(2):143 -160.
[48] Afzaal M, Saeed F, Saeed M, et al. Survival and stability of free and encapsulated probiotic bacteria under simulated gastrointestinal conditions and in pasteurized grape juice[J]. Journal of Food Processing and Preservation, 2020, 44(3):e14346.
[49] Wu Y, Tian P P, Li J F, et al. Weizmannia coagulans spores alleviates DSS-induced ulcerative colitis model by modulation of gut flora, metabolites and suppressing TLR4/MyD88/NF-κB pathway[J].Food Science and Human Wellness, 2026, 15(2):9250351.
[50] Liu R, Zheng R K, Liu G, et al. The cyclic lipopeptides suppress the motility of Vibrio alginolyticus via targeting the Na + -driven flagellar motor component MotX[J]. Environmental Microbiology,2020,22(10):4424 -4437.
[51] Yuan Q S, Yang P, Liu Y K, et al. Iturin and fengycin lipopeptides inhibit pathogenic Fusarium by targeting multiple components of the cell membrane and their regulative effects in wheat[J].Journal of Integrative Plant Biology, 2025, 67(8):2184 -2197.
[52] Du Y R, Liu L, Yan W L, et al. The anticancer mechanisms of exopolysaccharide from Weissella cibaria D-2 on colorectal cancer via apoptosis induction[J]. Scientific Reports, 2023, 13:21117.
[53] Fu L L, Peng J X, Zhao S S, et al. Lactic acid bacteria-specific induction of CD4 + Foxp3 +T cells ameliorates shrimp tropomyosininduced allergic response in mice via suppression of mTOR signaling[J]. Scientific Reports, 2017, 7:1987.
[54] Ahmadi M, Khajeh F, Shahbahrami R, et al. Advanced synbiotic delivery platforms:integrating prebiotic alginate co-encapsulants for probiotic protection in functional foods[J]. Carbohydrate Polymer Technologies and Applications, 2025, 12:101022.
[55] 郭毫单, 吴影, 韦玉琼, 等. 凝结魏茨曼氏菌BC99 应急能量棒研制及抗疲劳效应研究[J]. 食品工业科技, 2025, 46(1):218 -230.Guo H D, Wu Y, Wei Y Q, et al. Preparation and anti-fatigue function of Weizmannia coagulans BC99 emergency energy bar[J].Science and Technology of Food Industry,2025,46(1):218 -230.
[56] 潘兴亮, 王玉田, 郑瑞峰, 等. 凝结芽孢杆菌对蛋鸡生产性能、蛋品质及肠道菌群的影响[J]. 当代畜禽养殖业, 2020, 40(1):10 -11.Pan X L, Wang Y T, Zheng R F, et al. Effects of Bacillus coagulans on performance, egg quality and intestinal flora of laying hens[J]. Modern Animal Husbandry, 2020, 40(1):10 -11.
[57] 张坤. 添加凝结魏茨曼氏菌对大口黑鲈幼鱼生长性能、免疫力以及肠道组织的影响[J]. 福建农业科技, 2025, 56(9):42 -48.Zhang K. Effects of weizmannia coagulans on growth performance,immunity and intestinal histology of juvenile Micropterus salmoides[J]. Fujian Agricultural Science and Technology, 2025, 56(9):42 -48.
[58] Ahmadi-Khorram M, Hatami A, Asghari P, et al. Probiotics mitigate stress and inflammation in malnourished adults via gut microbiota modulation:A randomized controlled trial[J]. Frontiers in Nutrition, 2025, 12:1615607.
[59] Xie A J, Gao M G, Du H S, et al. Next-generation probiotics delivery:innovations and applications of single-cell encapsulation[J]. Current Opinion in Food Science, 2025, 61:101234.
[60] Ji C Y, Li D Y, Liang Y, et al. Co-encapsulation of probiotics with functional components:design strategies, synergistic mechanisms, biomedical applications, and challenges for industrialization[J]. Journal of Materials Chemistry B, 2025, 13(41):13122 -13153.
[61] Yao M F, Li B, Xiao H, et al. Microencapsulation of Lactobacillus salivarious Li01 for enhanced storage viability and targeted microbiome delivery[J]. The FASEB Journal, 2017, 31. DOI:10.1096/fasebj.31.1_supplement.965.8.
[62] Yang Q Q, Sun F B, Meng X Z, et al. An integrated biorefinery approach to obtain xylo-oligosaccharides from corncob using lactic acid-rich fermentation broth[J]. Journal of Cleaner Production,2023, 397:136513.
[63] Konuray G, Erginkaya Z. Potential use of Bacillus coagulans in the food industry[J]. Foods, 2018, 7(6):92.
[64] Yang Q Q, Sun F B, Meng X Z, et al. An integrated biorefinery approach to obtain xylo-oligosaccharides from corncob using lactic acid-rich fermentation broth[J]. Journal of Cleaner Production,2023, 397:136513.