双果糖酐Ⅲ(difructose anhydride Ⅲ,DFA Ⅲ)是一种由2 个果糖单元通过2 个糖苷键连接形成的环状二糖,作为低热量甜味剂,其甜度约为蔗糖的一半,且具备促进双歧杆菌生长、预防龋齿、增强矿物质(如钙)吸收等多种生理功能,在食品和制药工业中具有广阔的应用前景[1]。 然而,DFA Ⅲ的商业化进程受限于高昂的生产成本,因此开发高效的生产策略成为当前研究的核心需求。 DFA Ⅲ的制备主要包括化学合成法和酶促生物转化法,其中化学合成法需在酸性催化剂和高温条件下进行,存在产物纯度低、能耗高、环境友好性差等问题[2];而酶促生物转化法以菊粉果糖转移酶(inulin fructotransferase, IFTase;EC 4.2.2.18)为核心催化剂,通过催化菊粉的β-2,1-果聚糖解聚反应生成DFA Ⅲ,具有反应条件温和、产物专一性强、绿色环保等优势,被认为是实现DFAⅢ低成本商业化的最优路径[3-4]。
IFTase 作为DFA Ⅲ酶法生产的关键酶,其来源和生产效率直接决定了DFA Ⅲ的工业化可行性。 迄今为止,IFTase 已从节杆菌属(Arthrobacter sp.)[5]、黄杆菌属(Flavobacterium sp.)[6]、芽孢杆菌属(Bacillus sp.)[7-10]等多种微生物中分离鉴定,其中节杆菌属菌株是主要的IFTase 来源。 已报道的野生IFTase 产生菌株普遍存在酶活力低(低于100 U/mL)、热稳定性不佳等缺陷,限制了DFA Ⅲ的规模化生产。
为提升IFTase 的产量,研究者尝试在大肠杆菌(Escherichia coli)、巴斯德毕赤酵母、酿酒酵母等宿主中进行异源表达[11-12]。 例如,采用毕赤酵母GS115异源表达金黄节杆菌(Arthrobacter aurescens) SK 8.001来源的IFTase,通过高细胞密度流加发酵获得了105.4 U/mL 的胞外酶活力[13];采用重组酿酒酵母分泌表达IFTase 也获得了较高的分泌量[14]。 然而,异源表达系统仍存在诸多瓶颈[15]:一方面,重组菌株的构建和发酵工艺复杂,需严格调控启动子、信号肽等元件,增加了生产成本;另一方面,部分异源表达的IFTase 存在稳定性差、酶活力损失率高等问题,难以适配工业化生产需求。 因此,挖掘具有高酶活力、优异稳定性的新型IFTase 产生菌株,解析其高效产酶的分子机制,对于推动DFA Ⅲ的商业化进程具有重要意义。
本研究从环境中筛选获得一株新型金黄色类节杆菌(Paenarthrobacter aurescens) QL1.001 菌株,该菌株可直接发酵产IFTase,酶活力可达63.31 U/mL,且具备优异的热稳定性,60 ℃加热3 h 后仍保持酶活力[16]。 相较于已报道的野生菌株和部分异源表达系统,该菌具有发酵工艺简单、酶学性能适配工业化需求等显著优势。 为进一步开发该菌株的应用潜力,本研究从P.aurescens QL1.001 中克隆IFTase 基因并在大肠杆菌中进行异源胞外表达,系统优化IFTase 的生产条件,旨在为新型IFTase 的高效生产提供菌株资源和理论基础,加速DFA Ⅲ的工业化应用进程。
1 材料与方法
1.1 材料与试剂
1.1.1 菌株
实验室保存菌株P.aurescens QL1.001。
1.1.2 试剂
双果糖酐Ⅲ,日本和光纯药工业株式会社;菊糖ORFTITM HP 型,比利时Beneo-Orafti;E. coli DH5α、E.coli BL21(DE3)、pET-28a( +)、引物、卡那霉素、异丙基-β-D-硫代半乳糖苷(isopropyl-beta-D-thiogalactopyranoside, IPTG),生工生物工程(上海)股份有限公司;细菌基因组DNA 提取试剂盒、质粒小提试剂盒,北京天根生化科技有限公司;Phanta® Max 超保真DNA 聚合酶、Marker DL5000、Marker DL15000,南京诺唯赞生物科技股份有限公司;胶回收试剂盒,广州飞扬生物工程有限公司;T4 DNA 连接酶、Hind Ⅲ内切酶、BamHⅠ内切酶,宝日医生物技术(北京)有限公司。 其他所有分析级化学品,包括反应物、培养基成分、盐和缓冲液(均为生化试剂),国药集团化学试剂有限公司。
1.1.3 培养基
种子培养基(g/L):蛋白胨10.0,氯化钠5.0,牛肉浸粉3.0,pH 值为7.0。
发酵培养基(g/L):菊糖25.0,NaNO3 3.0,酵母浸粉0.3,KH2 PO4 0.4,MgSO4 0.1,FeSO4·7H2 O 0.01,pH 值为7.0。
LB 培养基(g/L):胰蛋白胨10.0,酵母浸粉5.0,氯化钠10.0,pH 值为7.0。
TB 培养基(g/L):胰蛋白胨12.0,酵母浸粉24.0,甘油5.0,K2HPO4 16.4,KH2PO4 1.7,pH 值为7.0。
1.2 仪器与设备
SPL-250 生化培养箱,天津莱玻特瑞仪器设备公司;恒温培养振荡器,天津市欧诺仪器仪表有限公司;台式水浴恒温振荡器,太仓市强乐实验设备有限公司;立式压力蒸汽灭菌器,济南德强仪器有限公司;1260 型高效液相色谱仪、Sugar Pak 1 型钙型糖柱、示差折光检测器、BioTek 酶标仪,安捷伦科技有限公司;C1000 Touch PCR 仪、蛋白电泳仪,伯乐生命医学产品(上海)有限公司;JY200C 核酸电泳仪、JY-EPV-02蓝光切胶机,北京君意东方电泳设备有限公司;超声波细胞粉碎机,宁波新芝生物科技股份有限公司;超微量核酸蛋白检测仪,上海嘉鹏科技有限公司。
1.3 实验方法
1.3.1 基因克隆和质粒构建
根据NCBI 数据库中A. aurescens SK8. 001 的菊糖果糖转移酶基因序列( GenBank 登录号:HM138085.1),使用SnapGene 软件设计引物。 正向引物序列为 5′- CGCGGATCCATGGGAATTGATAAGACGCTTGA -3′(下划线部分为BamH I 限制性酶切位点),反向引物序列为5′- CCCAAGCTTTCAGGGCGTGGGCCGAATGG -3′(下划线部分为Hind Ⅲ限制性酶切位点)。 将保藏的P. aurescens QL1. 001 单菌落接种于种子培养基中,28 ℃、200 r/min 振荡培养24 h。 使用细菌DNA 提取试剂盒按说明书操作提取基因组DNA。 以提取的基因组DNA 为模板,采用Phanta 高保真DNA 聚合酶进行PCR 扩增,退火温度为63 ℃。 PCR 产物经1%(质量分数)琼脂糖凝胶电泳检测后,切胶回收目的基因片段。 用限制性内切酶BamH I 和Hind Ⅲ对回收的目的基因片段和pET-28a( +)载体分别进行双酶切,酶切产物经1%琼脂糖凝胶电泳分离后,使用凝胶回收试剂盒分别回收纯化。将纯化后的目的基因与线性化载体用T4 DNA 连接酶于16 ℃连接过夜。 连接产物转化至E. coli DH5α感受态细胞,涂布于含50 μg/mL 卡那霉素的LB 琼脂平板,37 ℃培养过夜,筛选阳性克隆。
1.3.2 菌株培养
本研究采用E. coli DH5α 感受态细胞作为宿主菌,将重组质粒转化至E. coli DH5α 感受态细胞,涂布于含50 μg/mL 卡那霉素的LB 琼脂平板,37 ℃培养12 ~16 h。 由于pET-28a( +)载体携带卡那霉素抗性基因,重组子可在含卡那霉素的平板上生长,据此筛选阳性转化子,并将所构建的重组质粒命名为pET-IFT。 挑取阳性克隆接种于含卡那霉素的LB 液体培养基中培养,提取重组质粒。 使用限制性内切酶BamH I 和Hind Ⅲ对重组质粒进行双酶切验证,通过琼脂糖凝胶电泳确认目的基因片段大小正确后,将验证无误的重组质粒pET-IFT 转化至表达宿主E. coli BL21(DE3)感受态细胞,涂布于含50 μg/mL 卡那霉素的LB 琼脂平板筛选阳性表达菌株。
1.3.3 SDS-PAGE 分析
在37 ℃含有卡那霉素的TB 培养基中培养携带pET-IFT 质粒的重组E. coli BL21(DE3),振荡培养至OD600值达到0.6 ~0.8。 随后将培养温度降至28 ℃,加入IPTG 至终浓度0.5 mmol/L 进行诱导表达。 诱导结束后,离心收集菌体,用去离子水洗涤,重悬于50 mmol/L PBS 缓冲液(pH 5.5)中。 将菌悬液置于冰浴中超声破碎(工作4 s,间歇5 s),总超声时间共5 min,细胞裂解液经离心(4 ℃,4 000 ×g,15 min)后收集上清液。 采用SDS-PAGE(12% 分离胶)对目标蛋白进行检测,凝胶经考马斯亮蓝R-250 染色后观察蛋白条带,并使用预染蛋白Marker 评估目标蛋白的分子质量[17]。
1.3.4 发酵培养基的优化
为全面提升E.coli-pET-IFT 的IFTase 合成能力,采用单因素方法优化培养基组成。 以基础发酵培养基为基础,发酵条件为28 ℃、220 r/min、72 h,IFTase酶活采用高效液相色谱法测定,每组实验设3 次重复。
a)碳源优化:以基础发酵培养基为起点,分别考察甘油、麦芽糖、果糖、蔗糖、葡萄糖5 种碳源,初始添加量均为5.0 g/L。 在此基础上,对初筛获得的最佳碳源设置0、5、10、15、20 g/L 共5 个浓度梯度,进一步优化其最适添加量。 b)氮源优化:采用“单一氮源初筛-复合氮源复筛-最佳浓度优化”的方法。 在确定的最佳碳源及其浓度基础上,将氮源作为唯一变量,固定总氮源添加量为36.0 g/L,首先分别考察酵母浸粉、大豆蛋白胨、胰蛋白胨、蛋白胨和牛肉浸粉5 种有机氮源对IFTase 酶活力的影响。 随后,选取初筛中表现最佳的3 种氮源,按质量比2∶1 两两组合配制复合氮源混合物,仍以36.0 g/L 的总质量浓度进行复筛,考察其对IFTase 酶活力的影响。 最后,对筛选出的最优复合氮源混合物设置20、30、40、50、60 g/L 共5 个浓度水平,确定其在培养基中的最佳添加量。 c)磷酸盐优化:在最优碳氮源组合的基础上,考察不同磷酸盐浓度对发酵的影响,设置总浓度0、30、60、90、120 mmol/L 的梯度实验,以确定最佳的磷酸盐浓度。
1.3.5 摇瓶发酵条件的优化
在优化培养基基础上,采用递进式单因素法优化发酵条件。 在250 mL 摇瓶中依次优化:初始pH(6.0、6.5、7.0、7.5、8.0、8.5)、IPTG 浓度(0.2、0.4、0.6、0.8、1.0 mmol/L)、培养温度(16、20、24、28、32 ℃)、培养时间(24、48、72、96、120 h),在每一步优化过程中,根据酶活力最高来选择最佳条件,并将其应用于所有后续实验。 每组实验设3 个平行。
1.3.6 重组酶的最适温度与热稳定性
分别测定野生酶和重组酶在30、40、50、60、70、80 ℃时的酶活力,设定测得的最高酶活力为100%,计算不同温度下野生酶和重组酶的相对酶活力,确定该酶的最适温度。
测定野生酶和重组酶的热稳定性。 分别将酶液在50、60、70 ℃下保温0.5、1、2、3、4 h 后测定残余酶活力,将未处理的酶活力设定为100%,计算在不同温度下保温后野生酶和重组酶的残余酶活力,测定野生酶和重组酶的热稳定性。
1.3.7 酶的测定
为评价IFTase 的活性,配制酶反应液2 mL,其中含5.0%(质量分数)菊糖0.8 mL,酶液经适当稀释后取0.2 mL,磷酸缓冲液1.0 mL(0.1 mol/L, pH 5.5)。在60 ℃下反应15 min,在100 ℃下加热10 min 终止反应。 1 单位(U) IFTase 定义为在60 ℃、pH 5.5 条件下每分钟生成1.0 μmol DFA Ⅲ所需的酶量。 DFAⅢ的测定采用Agilent 高效液相色谱系统,该系统配备Sugar Pak 1 色谱柱(6.5 mm ×300 mm)和折射率检测器。 以水为流动相,洗脱速率为0.4 mL/min,柱温为85 ℃,检测器温度为35 ℃。
1.4 数据处理
本研究中所有实验均重复3 次,结果取平均值,采用SPSS 20.0 软件和Origin 2021 进行统计分析。 采用Waller-Duncan 检验和最小显著差异法检验不同因素对IFTase 活力影响的显著性差异(P <0.05)。
2 结果与分析
2.1 IFTase 基因的克隆及异源表达
以P.aurescens QL1.001 基因组DNA 为模板,用引物IFTase-F/IFTase-R 进行PCR 扩增,成功获得长度约为1 353 bp 的目的片段(图1-a),与NCBI 数据库中IFTase 基因序列(GenBank 登录号:HM138085.1)一致。 用限制性内切酶BamH I 和Hind Ⅲ分别对目的片段和pET-28a( +)载体进行双酶切,回收纯化后用T4 DNA 连接酶于16 ℃连接过夜,构建重组质粒pET-IFT。 连接产物转化至E. coli DH5α 感受态细胞,筛选阳性克隆并提取质粒,经双酶切验证获得约5.3 kb 的载体条带和1 353 bp 的目的基因条带(图1-b),表明重组质粒构建成功。 将验证正确的重组质粒pET-IFT 转化至表达宿主E. coli BL21(DE3)感受态细胞,获得重组菌株E. coli-pET-IFT。 挑取阳性转化子于LB 液体培养基(含50 μg/mL 卡那霉素)中37 ℃振荡培养至OD600 值约为0.6 ~0.8 时,加入IPTG 至终浓度0. 5 mmol/L,28 ℃诱导表达。 SDSPAGE 分析显示,诱导后在分子质量约64 kDa 处出现明显的特异性蛋白条带(图1-c),与理论分子质量相符。 分别采用LB 和TB 培养基对重组菌进行诱导培养,测定酶活力分别为86.83 U/mL 和714.32 U/mL(图1-d),因此后续实验选用TB 培养基进行重组蛋白的表达。

图1 重组IFTase 的构建、表达及酶活力分析
Fig.1 Construction, expression, and activity analysis of recombinant IFTase
注:不同大写字母表示酶活力差异显著(P <0.05)(下同)。
2.2 发酵培养基中碳源对E.coli-pET-IFT 产IFTase的影响
碳源是微生物培养基中成本占比最高的组分,不仅作为微生物细胞结构的碳骨架来源,也为菌体生长及代谢活动提供能量[18]。 微生物对碳源种类极为敏感,并演化出复杂的调控网络以感知、摄取和利用环境中的碳源[19]。 因此,碳源和氮源的筛选与优化常作为培养基改良的关键目标,并通常可取得显著成效。
本研究以重组菌株E. coli-pET-IFT 为研究对象,考察了5 种碳源对IFTase 酶活力的影响。 结果表明,以甘油为碳源时酶活力最高(图2-a)。 进一步对甘油质量浓度进行优化,结果显示,IFTase 酶活力随甘油质量浓度的升高而增加,在5. 0 g/L 时达到峰值;超过该质量浓度后,酶活力呈下降趋势(图2-b)。高质量浓度甘油对酶活力的抑制效应可能与培养基渗透压升高有关,从而对菌体生长产生负面影响,OD600值的同步下降也支持这一推断。
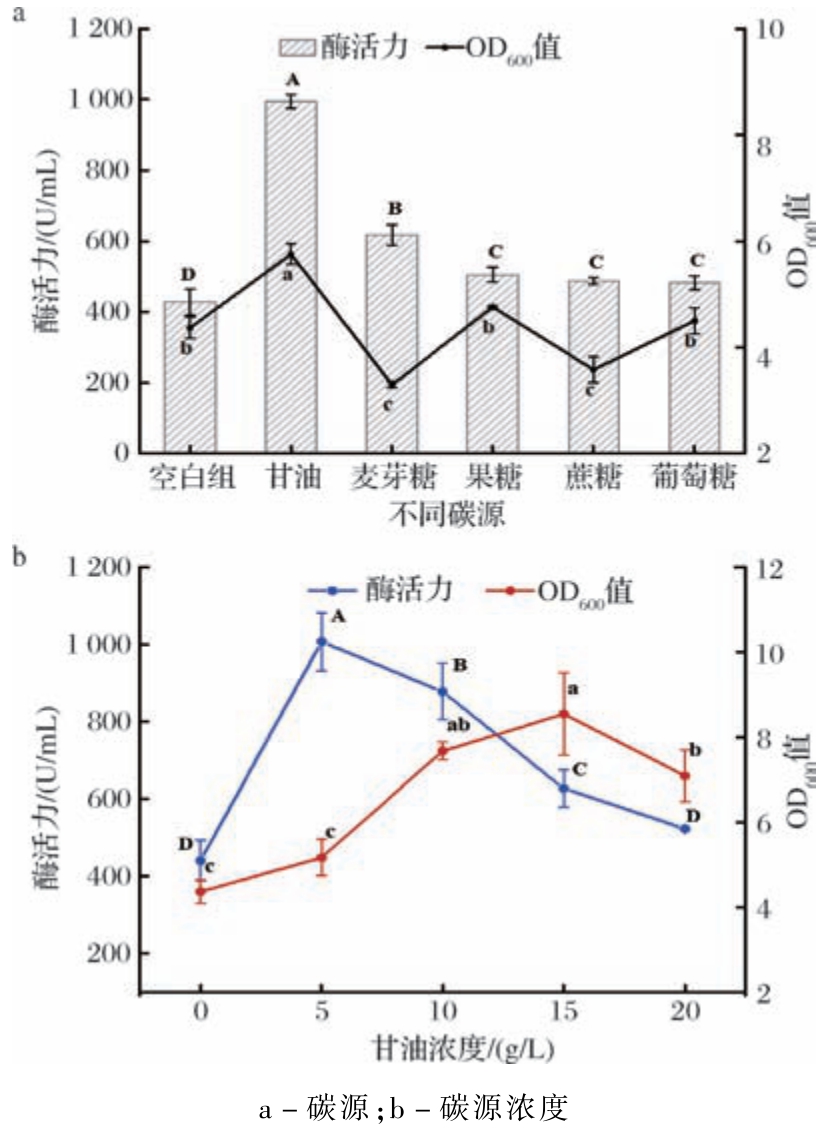
图2 碳源对E.coli-pET-IFT 产IFTase 的影响
Fig.2 Effects of carbon sources on IFTase activity by E.coli-pET-IFT
注:不同小写字母表示OD600 值差异显著(P <0.05)(下同)。
2.3 发酵培养基中氮源对E.coli-pET-IFT 产IFTase的影响
氮源筛选结果表明,有机氮源(酵母浸粉、大豆蛋白胨、胰蛋白胨)对重组菌株E. coli-pET-IFT 的生物量(以OD600 值衡量)及IFTase 酶活力均有显著提升作用(图3-a),相比之下,蛋白胨与牛肉浸粉在36 g/L 质量浓度下对生物量与IFTase 酶活力均表现出抑制作用。 在上述5 种氮源中,酵母浸粉获得的酶活力最高,为578.49 U/mL,大豆蛋白胨与胰蛋白胨亦使酶活力提高至对照组的约2 倍。 基于上述结果,推测不同氮源复配可能对IFTase 酶活力产生协同增效作用。 进一步考察酵母浸粉、大豆蛋白胨、胰蛋白胨按不同比例复配的影响,结果如图3-b 所示。 其中,酵母浸粉与胰蛋白胨按质量比2∶1 复配时效果最佳,酶活力达776.70 U/mL。 对该复合氮源进行质量浓度优化,结果显示30.0 g/L 时IFTase 酶活力达到最高值(图3-c)。 氮源是微生物合成氨基酸、核苷酸、ATP 及其他生物分子所必需的元素来源,对菌体生长与代谢至关重要[20]。 通过培养基氮源组分的系统优化,本研究显著提升了IFTase 在重组大肠杆菌中的表达水平。

图3 氮源对E.coli-pET-IFT 产IFTase 的影响
Fig.3 Effects of nitrogen sources on IFTase activity by E.coli-pET-IFT
2.4 发酵培养基中磷酸盐对E. coli-pET-IFT 产IFTase 的影响
磷酸盐在发酵体系中兼具pH 缓冲与代谢调控功能,磷元素直接参与能量传递及核酸、糖类与脂质的合成。 如图4 所示,磷酸盐浓度为60 mmol/L 时IFTase 酶活力最高。 当磷酸盐浓度超过该值时,酶活力呈下降趋势,推测高浓度磷酸盐可能抑制菌体生长或关键代谢酶活力。 因此,确定最适磷酸盐添加量为60 mmol/L。
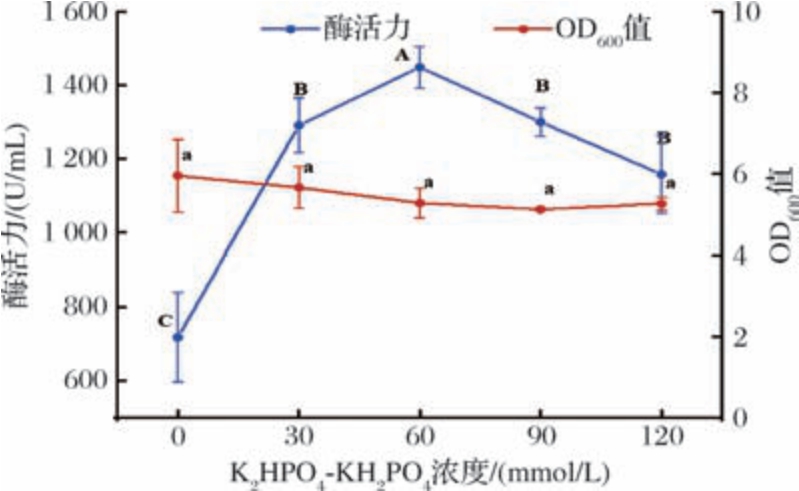
图4 磷酸盐浓度对E.coli-pET-IFT 产IFTase 的影响
Fig.4 Effects of phosphates salts on IFTase activity by E.coli-pET-IFT
2.5 摇瓶发酵条件的优化
在单因素试验的基础上,进一步对诱导条件进行优化。 结果表明,初始pH 为8.0 时IFTase 酶活力最高(图5-a);诱导剂IPTG 的最佳浓度为0.6 mmol/L(图5-b);最佳诱导温度为24 ℃(图5-c),诱导后培养48 h 酶活力达到峰值,为1 194.14 U/mL(图5-d)。 在上述优化的培养基成分及诱导培养条件的基础上进行综合发酵验证,IFTase 酶活力最终可达1 449.83 U/mL,是优化前的2 倍,约为野生菌株酶活力的20 倍。

图5 摇瓶发酵条件对IFTase 合成的影响
Fig.5 Effects of shaking flask fermentation conditions on IFTase synthesis
表1 汇总了不同来源IFTase 重组菌的酶活力比较结果。 由表1 可知,IFTase 的重组表达研究主要集中于节杆菌属(Arthrobacter sp.),宿主系统以大肠杆菌为主,早期多采用JM109、DH5α 等菌株及pUC 系列质粒,酶活力水平相对较低,如Arthrobacter sp.H65-7 胞内酶活力为180 U/mL[5],Arthrobacter sp.Buo141 总酶活达320 U/mL[23]。 随着pET 系列载体在BL21(DE3)宿主中的应用,酶活力水平显著提升,野野村氏菌属(Nonomuraea)sp. ID06A0189 来源的IFTase 在pET28b 系统中胞内酶活达到543 U/mL[8],是目前已报道摇瓶水平较高的结果。 此外,部分研究尝试在真核系统(如毕赤酵母、酿酒酵母)中实现IFTase 的胞外分泌表达,但酶活力水平相对较低,最高为161.6 U/mL[14]。 本研究在前期工作基础上,对重组IFTase 的培养基成分及诱导条件进行了系统优化,优化后酶活力达到1 449.83 U/mL,显著高于表1中已报道的摇瓶水平重组表达结果。 与同样采用pET 系统表达的Nonomuraea sp. ID06A0189 来源IFTase(543 U/mL)[8]相比,本研究酶活力提高了约2.67 倍;与早期pUC 系统中较高的结果(320 U/mL)相比[23],提高了约4.53 倍。 这一显著提升主要归因于两方面:一是野生菌P. aurescens QL1. 001 产酶潜力较高;二是通过系统的发酵条件优化,充分发挥了E.coli BL21(DE3)/pET 表达系统的优势。
表1 IFTase-Ⅲ的异源表达
Table 1 Heterologous expression of IFTase-Ⅲ

来源宿主重组用质粒酶活/(U/mL)时间参考文献Arthrobacter sp.H65-7E.coli JM109pUC181.1(胞外) 180(胞内)1997[5]A.globiformis C11-1E.coli JM109pUC1191.5(胞外) 2.3(胞内)2000[21]Arthrobacter sp.A-6E.coli DH5αpUC11815(胞内)2000[22]Arthrobacter sp.Buo141E.coli XL1-bluepUC18 和pUC19320(总)2001[23]Bacillus sp.snu-7E.coli BL21(DE3)pET15bNR2007[7]Arthrobacter aurescens SK 8.001E.coli BL21(DE3)pET22b( +)81.7(胞外) 26.3(胞内)2011[12]Arthrobacter sp.L68-1E.coli JM109pUC1191.04 U/mL(胞内)2013[24]Nonomuraea sp.ID06A0189E.coli BL21(DE3)pET28b543 (胞内)2014[8]Arthrobacter aurescens SK 8.001Pichia pastoris GS115pPIC9K105.4(胞外)2014[15]Arthrobacter sp.161MFSha2.1E.coli BL21(DE3)pET-22b( +)NR2015[9]Arthrobacter chlorophenolicus A6E.coli BL21(DE3)pET-22b( +)NR2018[10]Arthrobacter aurescens SK 8.001Saccharomyces cerevisiae 2805GSYGaTFP8161.6(胞外)2019[14]Arthrobacter sp.ISL-85E.coli BL21(DE3)pET-22b( +)NR2024[2]P.aurescensQL1.001E.coliBL21(DE3)pET-28a( +)1 449.83(胞外)2026本研究
注:NR 指文献无报道,加粗数据为本研究结果。
2.6 重组酶的最适温度及热稳定性分析
测定野生酶和重组酶在不同温度下的酶活力,结果如图6-a 所示。 野生酶与重组酶的最适温度均为60 ℃。 在不同温度下保温后测定野生酶和重组酶残余酶活力,结果表明(图6-b、6-c)在50 ℃条件下,重组酶和野生酶保温4 h 后残余酶活力均降低至90%左右,均表现出极高的稳定性,两者无显著差异。 在60 ℃条件下,重组酶和野生酶保温4 h 后残余酶活力均降低至85%左右,在70 ℃条件下,重组酶保温4 h 后残余酶活力为79.6%,略低于野生菌的87.5%。 总体而言,重组酶在50 ℃和60 ℃下保持了与野生菌相近的热稳定性,在70 ℃下虽略有下降,但仍维持较高活性。上述结果表明,重组酶与野生酶具有相近的热稳定性,异源表达未对酶蛋白的热稳定性造成明显影响。
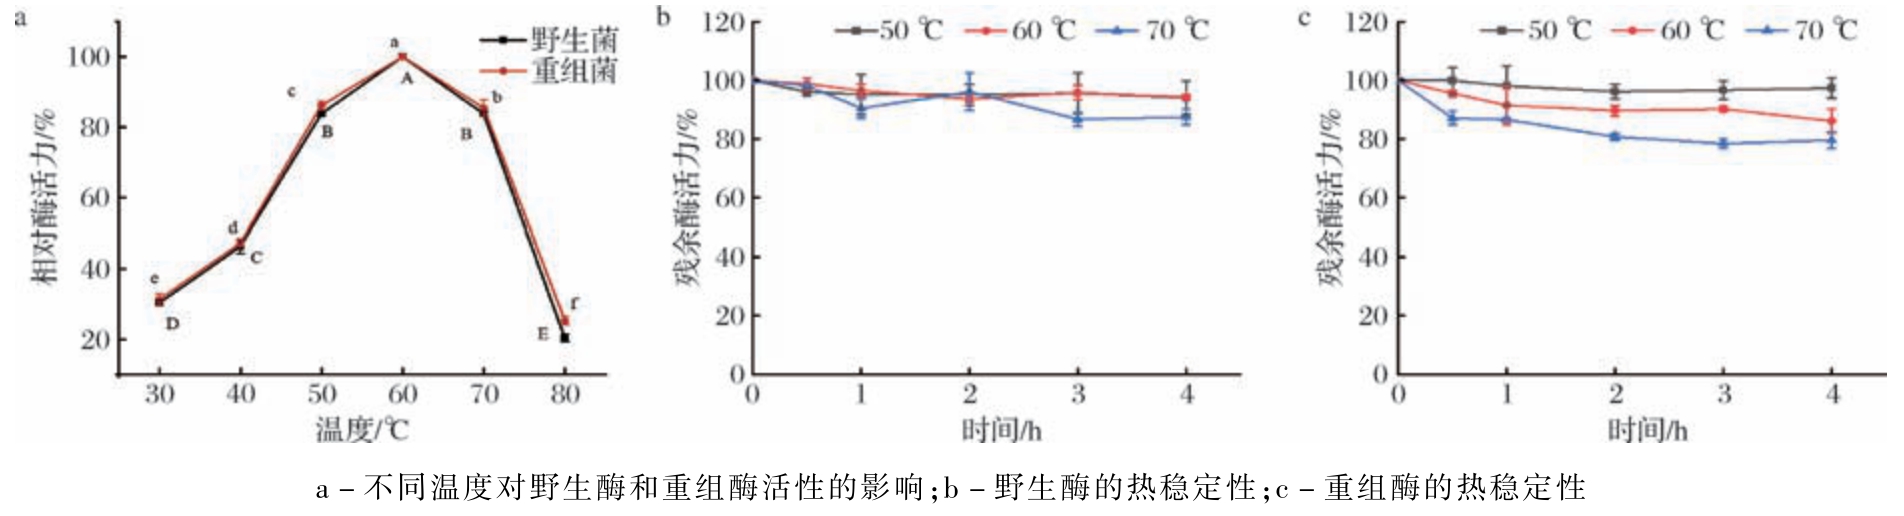
图6 野生酶与重组酶的最适温度及热稳定性
Fig.6 Optimal temperature and thermostability of wild-type and recombinant enzymes
3 结论
IFTase 是催化新型甜味剂DFA Ⅲ高效合成的关键酶。 本研究成功克隆了来源于P.aurescens QL1.001的IFTase 基因,构建重组工程菌E.coli-pET-IFT,实现IFTase 的异源表达,胞外酶活力达714.32 U/mL。 通过单因素试验对发酵培养基组成及诱导条件进行系统优化,确定最适培养基组成为(g/L):胰蛋白胨10.0、酵母浸粉20.0、甘油5.0、K2HPO4 9.0、KH2PO4 0.93,初始pH 8.0;最适诱导条件为:IPTG 浓度0.6 mmol/L、诱导温度24 ℃、诱导时间48 h。 在此优化条件下,IFTase 酶活力提升至1 449.83 U/mL,是优化前的2 倍,约为野生菌株的20 倍,显著高于目前已报道的IFTase重组表达水平,是目前已知的最高酶活力水平。
本研究着重于重组酶的高效表达及发酵条件优化,并初步验证了其与野生酶相近的热稳定性。 后续工作将对该酶进行系统的动力学表征,以进一步评价其催化效率。 目前该工艺仍以菊糖为主要底物,生产成本仍需进一步降低。 后续研究可着力于强化工程菌株的产酶性能,并积极探寻经济易得的底物替代方案,以全面提升该技术的工业竞争力。 综上,本研究为应用基因工程技术开发高产IFTase 工程菌株提供了重要参考,也为IFTase 及其催化产物DFA Ⅲ的工业化应用奠定了技术基础。
[1] Sojan A, Ekaette I. Difructose anhydrides as emerging functional food ingredients:Production methods, therapeutic potentials, and analytical perspectives[J]. Trends in Food Science & Technology,2026, 170:105607.
[2] Yu S H, Li Q T, Wang Z L, et al. Innovative application of a novel and thermostable inulin fructotransferase from Arthrobacter sp. ISL-85 to fructan inulin in burdock root to improve nutrition[J]. Food Chemistry, 2024, 441:138336.
[3] Li Q T, Wang Z L, Zhu M Y, et al. Metabolism of inulin via difructose anhydride I pathway in Microbacterium flavum[J]. Journal of Agricultural and Food Chemistry, 2024, 72(17):9647 -9655.
[4] Chen G, Wang Z X, Yang Y Q, et al. Elucidation of the mechanism underlying the sequential catalysis of inulin by fructotransferase[J]. International Journal of Biological Macromolecules, 2024,277:134446.
[5] Sakurai H, Yokota A, Tomita F. Molecular cloning of an inulin fructotransferase (depolymerizing) gene from Arthrobacter sp. H65-7 and its expression in Escherichia coli[J]. Bioscience, Biotechnology, and Biochemistry, 1997, 61(1):87 -92.
[6] Cheng M, Wu H, Zhang W L, et al. Difructose anhydride Ⅲ:A 50-year perspective on its production and physiological functions[J]. Critical Reviews in Food Science and Nutrition, 2022, 62(24):6714 -6725.
[7] Kim C S, Hong C K, Kim K Y, et al. Cloning, expression, and characterization of Bacillus sp. snu-7 inulin fructotransferase[J].Journal of Microbiology and Biotechnology, 2007, 17(1):37 -43.
[8] Pudjiraharti S, Ohtani M, Takano N, et al. Nonomuraea sp. ID06-A0189 inulin fructotransferase (DFA Ⅲ-forming):Gene cloning,characterization and conservation among other Nonomuraea species[J]. The Journal of Antibiotics, 2014, 67(2):137 -141.
[9] Wang X, Yu S H, Zhang T, et al. Identification of a recombinant inulin fructotransferase (difructose dianhydride Ⅲforming) from Arthrobacter sp. 161MFSha2.1 with high specific activity and remarkable thermostability[J]. Journal of Agricultural and Food Chemistry,2015, 63(13):3509 -3515.
[10] Zhu Y Y, Wang X, Yu S H, et al. Bioconversion of inulin to difructose anhydride Ⅲby a novel inulin fructotransferase from Arthrobacter chlorophenolicus A6[J]. Process Biochemistry, 2018,75:130 -138.
[11] Wang X, Yu S H, Zhang T, et al. From fructans to difructose dianhydrides[J]. Applied Microbiology and Biotechnology, 2015,99(1):175 -188.
[12] Zhao M, Jiang B, Hang H, et al. Efficient induction of inulin fructotransferase by inulin and by difructose anhydride Ⅲin Arthrobacter aurescens SK 8. 001[J]. European Food Research and Technology, 2013, 236(6):991 -998.
[13] Zhu Y Y, Yu S H, Zhang W L, et al. Recent advances on biological production of difructose dianhydride Ⅲ[J]. Applied Microbiology and Biotechnology, 2018, 102(7):3007 -3015.
[14] Ko H, Bae J H, Kim M J, et al. Microbial production of difructose anhydride Ⅲfrom Jerusalem artichoke Tuber powder by recombinant yeast Saccharomyces cerevisiae and Kluyveromyces marxianus[J]. Industrial Crops and Products, 2019, 135:99 -106.
[15] Zhan R R, Mu W M, Jiang B, et al. Efficient secretion of inulin fructotransferase in Pichia pastoris using the formaldehyde dehydrogenase 1 promoter[J]. Journal of Industrial Microbiology & Biotechnology, 2014, 41(12):1783 -1791.
[16] Cui J X, Li T C, Zhao Y Y, et al. Enhancement in stability and reusability:Immobilization and characterization of inulin fructotransferase from Paenarthrobacter aurescens QL1.001 in calcium alginate microcapsules[J]. Food Bioscience, 2025, 64:105815.
[17] El-Sayed G M, Agwa M M, Emam M T H, et al. Utilizing immobilized recombinant serine alkaline protease from Bacillus safensis lab418 in wound healing:Gene cloning, heterologous expression,optimization, and characterization[J]. International Journal of Biological Macromolecules, 2024, 270:132286.
[18] Mujdeci G N, Bozdemir M T, Ozbas Z Y. Valorization of various natural substrates as alternative carbon sources in fermentation media for pullulan production by domestic Aureobasidium pullulans AZ-6[J]. ACS Omega, 2026, 11(5):7627 -7640.
[19] Zhang K, Zhao W C, Chen S, et al. High-level expression of sucrose isomerase in Bacillus subtilis through expression element optimization and fermentation optimization[J]. Applied Biochemistry and Biotechnology, 2025, 197(2):926 -942.
[20] Mutanda I, Zahoor, Sethupathy S, et al. Optimization of heterologous production of Bacillus ligniniphilus L1 laccase in Escherichia coli through statistical design of experiments[J]. Microbiological Research, 2023, 274:127416.
[21] Haraguchi K, Mori S, Hayashi K. Cloning of inulin fructotransferase (DFA Ⅲ-Producing) gene from Arthrobacter globiformis C11-1[J]. Journal of Bioscience and Bioengineering, 2000, 89(6):590 -595.
[22] Kim H Y, Kim C W, Choi Y J. Cloning and expression of inulin fructotransferase gene of Arthrobacter sp. A-6 in Escherichia coli and Bacillus subtilis[J]. Journal of Microbiology and Biotechnology, 2000, 10(2):275 -280.
[23] Jahnz U, Schubert M, Vorlop K D. Effective development of a biotechnical process:Screening, genetic engineering, and immobilization for the enzymatic conversion of inulin to DFA Ⅲon industrial scale[J]. Landbauforschung Völkenrode,2002(SH 241):113-119.
[24] Haraguchi K. Cloning of inulin fructotransferase (DFA Ⅲ-producing) gene from Arthrobacter sp. L68-1[J]. Carbohydrate Polymers, 2013, 93(2):473 -477.