全球范围内肥胖症、糖尿病等代谢性疾病的发病率持续攀升,已成为严峻的公共卫生挑战,推动了食品工业与营养领域对膳食干预策略的探索。 作为一种具有高效甜味特性的物质,非营养型甜味剂(nonnutritive sweeteners, NNS)甜度可以达到蔗糖的数十倍甚至数千倍之高,而且几乎不含热量,所以成为替代白糖的理想选择[1-2]。 这些化合物通过激活味蕾中的甜味受体(T1R2/T1R3 异源二聚体)产生甜味感知,但其代谢途径与蔗糖截然不同,多数NNS 无法被人体酶系统水解,而是以原型形式经肾脏排泄或由肠道微生物代谢[3-4]。 联合国粮农组织与世界卫生组织联合组建的食品添加剂联合专家委员会设定了每种NNS 每日允许摄入量(acceptable daily intake,ADI),但其安全性争议始终存在,尤其是长期暴露对生理功能的潜在影响仍需深入探究[1,5]。
近年来研究发现,NNS 的健康风险源于其在体内触发的多系统、多通路复杂交互作用,其中肠道菌群失调是构成这一复杂网络的核心环节[6]。 NNS 可与肠道菌群发生复杂相互作用,导致菌群比例失衡,进而影响肠道屏障功能与代谢产物生成。 这种菌群扰动还可能通过“肠-脑轴”、代谢及免疫系统产生协同作用,共同影响神经认知功能,且与代谢性疾病、心血管疾病的发病风险存在关联[4,7]。 然而,现有研究仍存在诸多空白:人体临床试验与动物实验、体外研究结果不一致,不同类型NNS 的生物学效应缺乏系统对比,个体遗传背景与饮食模式对NNS 响应的调控机制尚不明确。 因此,系统阐明NNS 通过上述多系统介导的复杂作用网络,不仅有助于填补营养学与病理生理学交叉领域的研究空白,更能为制定精准化膳食建议、规范NNS 在食品工业中的应用以及相关慢性疾病的防控提供关键科学依据,具有重要的理论价值与实践意义。
1 NNS 概述
根据NNS 来源与化学性质,主要分为人工合成型(糖精、阿斯巴甜、安赛蜜、三氯蔗糖、纽甜等)和天然提取型(甜菊糖苷、罗汉果苷、索马甜等)两大类。在体内代谢方面,人工甜味剂:三氯蔗糖在人体内吸收率较低,约85%以原形通过粪便排出,部分可能通过肠道微生物代谢[8];阿斯巴甜在肠道中被水解为苯丙氨酸、天冬氨酸和甲醇,随后被吸收并参与体内代谢[9];安赛蜜在小肠中几乎被完全吸收,血液分布到不同组织,在24 h 内随尿液排出,小于1%从粪便中排出[10];糖精在人体内吸收后几乎不被代谢,主要通过尿液以原形排出[11]。 天然甜味剂:甜菊糖苷在肠道中被微生物群水解为甜菊醇,后者可能被吸收并进一步代谢[12];罗汉果苷通过肠道细菌代谢为次级苷元和罗汉果醇,这些代谢产物可能被吸收并发挥生物活性[13];索马甜作为一种蛋白质甜味剂,在胃肠道中被消化酶分解为氨基酸,吸收后参与蛋白质代谢,几乎不产生热量[14]。 人工甜味剂主要通过吸收后以原形排泄或被分解后代谢,而天然甜味剂则主要依赖肠道微生物降解并产生可吸收的活性代谢产物,NNS的特性如表1 所示。 尽管NNS 被广泛用作糖的替代品,但其长期健康效应却并非如其热量特性一般“惰性”,越来越多的证据表明,其摄入可能与机体多个重要生理系统的潜在风险相关联,其背后涉及从肠道微环境到全身系统性的复杂作用机制。
表1 NNS 特性
Table 1 Characteristics of NNS
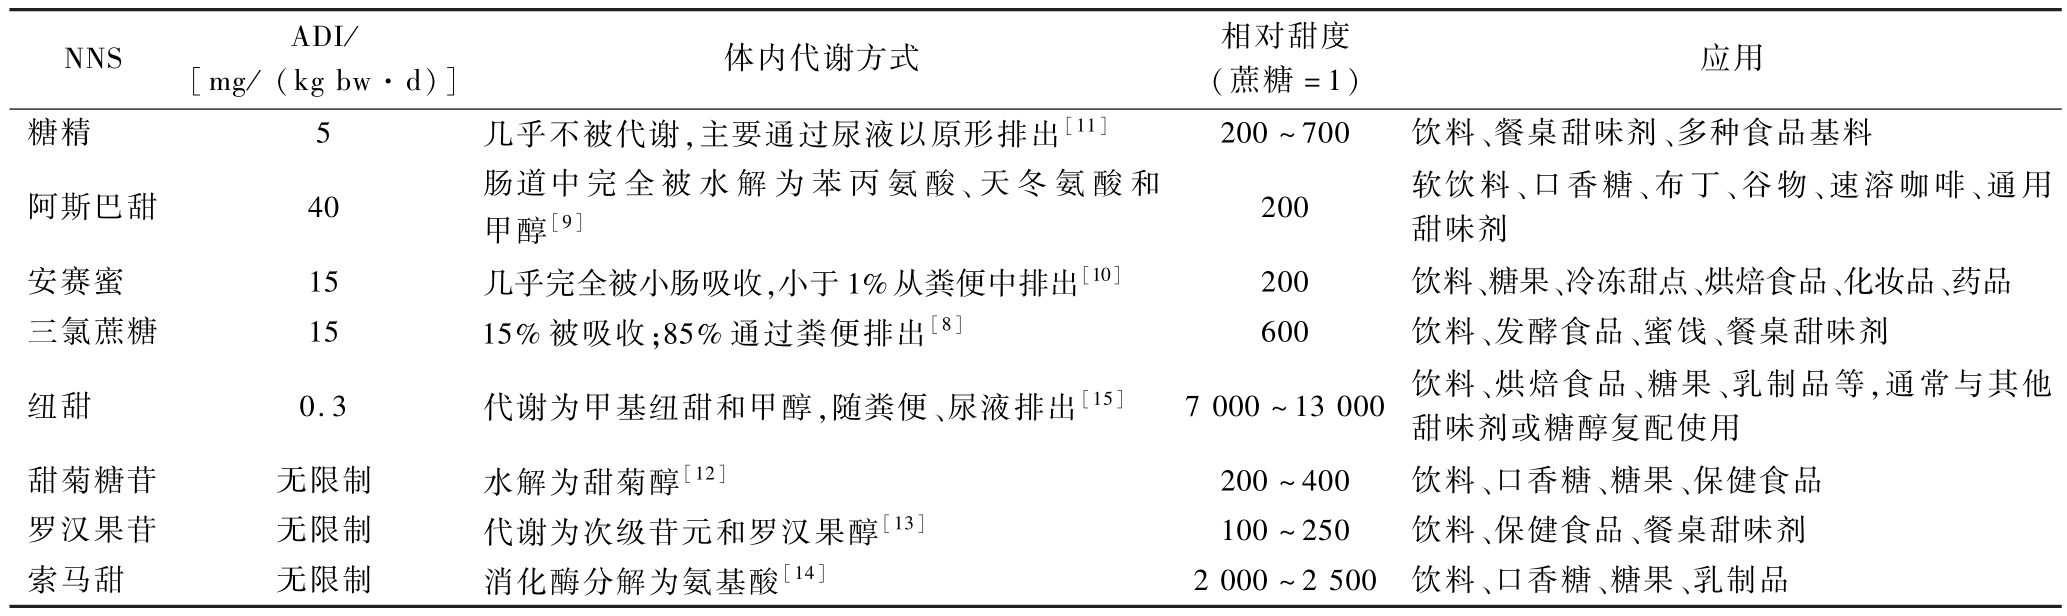
NNSADI/[mg/ (kg bw·d)]体内代谢方式相对甜度(蔗糖=1)应用糖精 5几乎不被代谢,主要通过尿液以原形排出[11]200 ~700饮料、餐桌甜味剂、多种食品基料阿斯巴甜40肠道中完全被水解为苯丙氨酸、天冬氨酸和甲醇[9]200软饮料、口香糖、布丁、谷物、速溶咖啡、通用甜味剂安赛蜜 15几乎完全被小肠吸收,小于1%从粪便中排出[10]200饮料、糖果、冷冻甜点、烘焙食品、化妆品、药品三氯蔗糖1515%被吸收;85%通过粪便排出[8]600饮料、发酵食品、蜜饯、餐桌甜味剂纽甜 0.3代谢为甲基纽甜和甲醇,随粪便、尿液排出[15]7 000 ~13 000 饮料、烘焙食品、糖果、乳制品等,通常与其他甜味剂或糖醇复配使用甜菊糖苷无限制水解为甜菊醇[12]200 ~400饮料、口香糖、糖果、保健食品罗汉果苷无限制代谢为次级苷元和罗汉果醇[13]100 ~250饮料、保健食品、餐桌甜味剂索马甜 无限制消化酶分解为氨基酸[14]2 000 ~2 500 饮料、口香糖、糖果、乳制品
注:通用甜味剂:指具备优异的化学稳定性(耐热、耐酸、耐贮存),能够适应多种食品加工工艺(如烘焙、杀菌、发酵),从而可广泛应用于各类食品和饮料配方的甜味剂;餐桌甜味剂:特指经过分装和包装设计,以独立小份量形式(如小袋、片剂、瓶装液体)直接销售给消费者,供其在餐桌上自行添加到饮品或食物中的甜味剂产品。
2 NNS 对肠道健康的影响及机制
NNS 可通过2 条关键通路协同促进肠道疾病的发生与发展:其摄入可诱导肠道菌群失调,进而损害肠道屏障;部分甜味剂可直接作用于肠上皮细胞,通过影响紧密连接蛋白表达等机制,进一步破坏上皮完整性。 菌群失调所加剧的炎症微环境与上皮直接损伤共同削弱肠道黏膜防御,增加肠道通透性,最终持续激活肠道免疫系统,驱动慢性炎症,构成炎症性肠病、肠易激综合征等肠道疾病发生与恶化的核心病理基础。
2.1 肠道菌群失调
糖精和三氯蔗糖等NNS 可与肠道菌群相互作用显著影响肠道健康,这些甜味剂会改变肠道菌群组成,促进菌群失调,表现为促炎细菌如变形菌门(Proteobacteria)等丰度增加,同时乳酸杆菌(Lactobacillus)、双歧杆菌(Bifidobacterium)等有益菌减少[16],使菌群代谢产物短链脂肪酸(short-chain fatty acids,SCFAs)生成减少与脂多糖(lipopolysaccharide,LPS)合成增加,肠道通透性增加,导致肠道屏障功能受损(紧密连接蛋白表达下调与通透性增高)。 随之,肠道内容物易位触发肠黏膜固有免疫持续活化,经TLR4/NF-κB 信号轴驱动局部慢性低度炎症,进而破坏免疫稳态与肠神经调节,构成炎症性肠病与肠易激综合征等肠道疾病发生发展的核心病理机制[17]。
Bian 等[18-19]的研究发现,长期(6 个月)摄入三氯蔗糖(0.1 mg/mL)或糖精(0.3 mg/mL),剂量均相当于人类ADI 会引发小鼠肠道菌群严重失调。 这不仅表现为促炎细菌[如瘤胃球菌属(Ruminococcus)]的富集、炎症通路激活和LPS 合成显著提升,还直接导致了肠道屏障功能受损(通透性增加)[18-19];人体体外模拟实验进一步证实了糖精和三氯蔗糖对菌群稳态的扰动作用。 体外模拟发酵5 名健康志愿者的粪便样品,采用静态GIS1 体外模拟系统(GIS1-Phase 2)模拟人类结肠的三段环境,系统通过注入无菌CO2 并采用1 mol/L NaOH 精确调控pH 值,模拟结肠的厌氧环境。 三氯蔗糖和糖精(活性物质约40 mg)通过减少厚壁菌门(Firmicutes)和双歧杆菌,减少SCFAs合成(尤其是丁酸),同时提高肠杆菌科(Enterobacteriaceae)比例,导致铵盐积累和pH 值上升,进一步抑制益生菌,形成恶性循环,促进肠道菌群失调[20]。 两项动物实验在疾病模型均证实三氯蔗糖通过“菌群-屏障-免疫”机制加剧肠道疾病。 在氧化偶氮甲烷(azoxymethane,AOM) 和葡聚糖硫酸钠(dextran sulfate sodium,DSS)/DSS 诱导的结肠癌或结肠炎小鼠模型中,1.5 mg/mL 三氯蔗糖喂养6 周可导致,有害菌梭菌属(Clostridium)、消化链球菌属(Peptostreptococcus)等丰度增加,而有益菌如双歧杆菌等丰度降低,并引起β-葡萄糖醛酸酶活性降低和胰蛋白酶和糜蛋白酶的活性升高,降解结肠紧密连接蛋白(occludin 和claudin-1),进而加重肠道屏障损伤。 同时,TLR4/Myd88/NF-κB 或TLR5/MyD88/NF-κB 炎症信号通路被显著激活,促炎细胞因子(如TNF-α、IL-1β、IL-6)水平大幅上升,显著加剧了结肠炎和肿瘤发生发展密切相关的STAT3/VEGF 信号通路[21-22]。
2.2 肠道上皮细胞的直接损伤机制
多项体外研究明确揭示了阿斯巴甜、三氯蔗糖、纽甜和糖精在高浓度(10 000 μmol/L)下对肠道上皮细胞具有直接的细胞毒性,主要表现为诱导细胞凋亡和抑制细胞存活,显著降低Caco-2 细胞单层的跨上皮电阻(transepithelial resistance,TEER)值,导致肠道黏膜层变薄、完整性下降[23-24]。 Shil 等[23] 研究发现,即使较低浓度(如100 μmol/L)的安赛蜜、纽甜和阿斯巴甜也能在24 h 内显著降低Caco-2 细胞中claudin-3 蛋白的表达水平,直接导致屏障功能的减弱。 关键的介导者是位于肠道上皮细胞顶侧膜的甜味受体(T1R3),研究证实,当使用siRNA 技术特异性敲低Caco-2 细胞中T1R3 的表达后,高浓度三氯蔗糖、阿斯巴甜、纽甜和糖精(10 000 μmol/L)诱导的细胞死亡效应被显著减弱,表明NNS 的细胞毒性至少部分是通过激活T1R3 信号通路介导的[23],随之触发了下游一系列信号转导事件,最终导致紧密连接蛋白表达的减少或结构重排,从而破坏了上皮屏障的物理完整性,进而导致肠道疾病。
3 NNS 对中枢神经系统的影响及机制
NNS 对中枢神经系统的影响日益受到关注。 近期一项针对巴西成年人的健康纵向研究,基线时共纳入12 772 名无痴呆症的参与者(54.8%为女性,年龄35 ~74 岁),经过中位8 年的随访,通过食物频率问卷评估了参与者日常饮食中甜味剂的总体摄入量。结果显示阿斯巴甜、糖精、安赛蜜、赤藓糖醇、山梨糖醇、木糖醇的较高摄入量与中年成年人的认知功能加速下降相关,特别是在记忆和言语流畅性领域,天然甜味剂塔格糖未显示有害关联,且该现象在糖尿病患者中更为显著[25]。 动物实验也发现相似现象,使大鼠持续18 周摄入阿斯巴甜[4.1 mg/(kg·d)]、三氯蔗糖[2.0 mg/(kg·d)]、甜菊糖苷[3.4 mg/(kg·d)],发现长期摄入NNS 虽未引起体重显著增加,但对血脂代谢产生了不利影响,阿斯巴甜损伤短期记忆(1 h测试)、三氯蔗糖和甜菊糖苷损伤长期记忆(24 h 测试)[26],提示其潜在健康风险。 NNS 可通过“肠-脑轴”进行双向通讯,肠道菌群的改变可通过神经、内分泌和免疫途径影响大脑功能和行为[27];还可通过直接作用于中枢神经系统发挥神经认知与行为调控作用。
3.1 肠-脑轴的调控机制
NNS 摄入导致肠道菌群紊乱,其代谢产物(如SCFAs、色氨酸衍生物)通过迷走神经传入纤维将信号传递至脑干、下丘脑等脑区,调控下丘脑-垂体-肾上腺(hypothalamic-pituitary-adrenal,HPA)轴活性,影响神经递质(如5-羟色胺、γ-氨基丁酸、多巴胺)的合成与释放[28-29],进而干扰情绪调节和认知过程。
一项许氏平鲉幼鱼20 d 安赛蜜(设置0. 01、1、10 mg/L 3 个质量浓度组,期间每日更换80%体积的海水)暴露实验发现,1 mg/L 安赛蜜暴露加剧了幼鱼典型的焦虑样行为,包括趋触性增强、过度活跃和攻击性增加,并进而破坏了鱼群的凝聚力和协调性。 安赛蜜暴露重塑了肠道微生物群落,在安赛蜜(1 mg/L)暴露组,蓝藻门(Cyanobacteria)丰度升高,属水平上假单胞菌属(Pseudomonas spp.)和气单胞菌属(Aeromonas spp.)等条件致病菌的相对丰度显著增加,有益菌盐单胞菌属在暴露组中几乎消失,导致脑内神经递质紊乱,多巴胺、γ-氨基丁酸、谷氨酸等神经递质合成增加;而宿主脑内谷胱甘肽应激性升高又反过来导致变形菌门的丰度下降,共同介导了安赛蜜经由“菌群-肠-脑轴”诱发焦虑样行为的毒性通路[30]。 另一项对斑马鱼的研究也发现,三氯蔗糖(100 μg/L)持续30 d 水体暴露会诱发斑马鱼焦虑、抑郁、攻击和记忆损伤。 三氯蔗糖暴露使拟杆菌门(Bacteroidetes)和厚壁菌门丰度降低,放线菌门(Actinobacteria)、变形菌门(Proteobacteria)、蓝藻门和疣微菌门(Verrucomicrobia)的丰度升高,影响菌群代谢功能(SCFAs、血清素前体生成)。 且与乙酰胆碱酯酶(acetylcholin esterase,AChE)活性降低、5-羟色胺耗竭和皮质醇水平升高相关,表明神经毒性和HPA 轴失调。 最终表现为焦虑、抑郁、攻击和记忆损伤等行为异常[28]。
3.2 中枢神经系统的直接作用机制
除“肠-脑轴”外,NNS 或其代谢产物,能够直接进入血液循环,并通过血脑屏障,对中枢神经系统细胞产生直接影响。
3.2.1 血脑屏障的穿透作用
阿斯巴甜及其代谢物苯丙氨酸可直接穿过血脑屏障,入大脑后会竞争性抑制其他芳香族氨基酸(如色氨酸、酪氨酸)的摄取,这些氨基酸是神经递质(血清素、多巴胺)合成的前体物质,其摄取受阻会直接导致脑内神经递质失衡[31]。 Wistar 大鼠连续14 d 摄入阿斯巴甜[75 mg/(kg·d)]也发现苯丙氨酸还可通过抑制BDNF/TrkB 通路,导致海马神经递质代谢紊乱,引起的记忆障碍[32-33]。
3.2.2 中枢神经细胞应激与死亡
人小胶质细胞克隆3(human microglia clone 3,HMC3)持续暴露于三氯蔗糖(1 mmol/L)7、14、21 d,发现长期三氯蔗糖暴露可激活神经炎症通路,通过SIRT1/NLRP3/IL-1β/GPx4 信号通路诱导大脑中的免疫细胞(小胶质细胞)炎症反应和铁死亡,引发学习记忆能力减退和空间记忆和认知灵活性下降[34-36];另一项研究也证实三氯蔗糖、阿斯巴甜和安赛蜜(5、10、20 mmol/L)可诱导下丘脑细胞细胞系(mHypoE-N43/5)中内质网应激相关基因的表达水平,导致轴突生长异常,从而影响神经回路形成。 而天然甜味剂甜菊糖苷(20 mmol/L),对下丘脑内质网应激仅产生轻度影响,且对轴突生长、细胞毒性及caspase3/7(凋亡相关蛋白)活性均无不良作用[37]。
4 NNS 对代谢健康的影响及机制
NNS 被广泛推荐用于体重和血糖管理,但大量流行病学研究和部分机制研究对其在预防肥胖和2型糖尿病(type 2 diabetes mellitus,T2D)等代谢疾病中的作用提出了质疑。 一项基于法国大规模前瞻性NutriNet-Santé 队列,共纳入105 588 名成年参与者(79.2%为女性,平均年龄为42. 5 岁),参与者在基线时没有患T2D,8. 50% 的参与者有血脂异常史,7.55%的参与者有高血压史,13.8%的参与者有糖尿病家族史。 中位随访时间长达9.1 年, 共记录了972例新发T2D 病例。 该研究通过重复收集的24 h 饮食记录,并结合食品添加剂成分数据库,首次实现了对膳食中所有来源的人工甜味剂进行精确的定量评估[7]。 研究发现,有37.1% 的参与者消费人工甜味剂,消费者的平均摄入量为每日(42.3 ±72.1) mg/d,约相当于每日饮用100 mL 人工甜味饮料。 研究人员根据摄入量将消费者进一步分为不同组别进行分析,总人工甜味剂的高剂量阈值(男性>16. 4 mg/d、女性>18. 5 mg/d)、阿斯巴甜(男性>13. 3 mg/d,女性>15.0 mg/d)、安赛蜜(男性>5.05 mg/d,女性>5.40 mg/d)、三氯蔗糖(男性>3. 44 mg/d,女性>3.30 mg/d)。 较高剂量的人工甜味剂摄入与T2D 风险显著增加存在关联。 阿斯巴甜[风险比(hazard ratio, HR)1.63]、安赛蜜(HR 1.70)和三氯蔗糖(HR 1.34)的高消费均显示出更高的T2D 风险,且存在显著的剂量-反应关系,即随着摄入量的增加,风险持续上升[7]。 NNS 对代谢疾病的影响机制主要涉及肠道菌群紊乱、肠促胰素分泌失调、食欲调节与奖赏机制及胰腺β 细胞异常刺激的相互作用,揭示了人工甜味剂通过复杂机制诱发糖尿病、胰岛素抵抗、肥胖等代谢紊乱的病理过程(图1)。
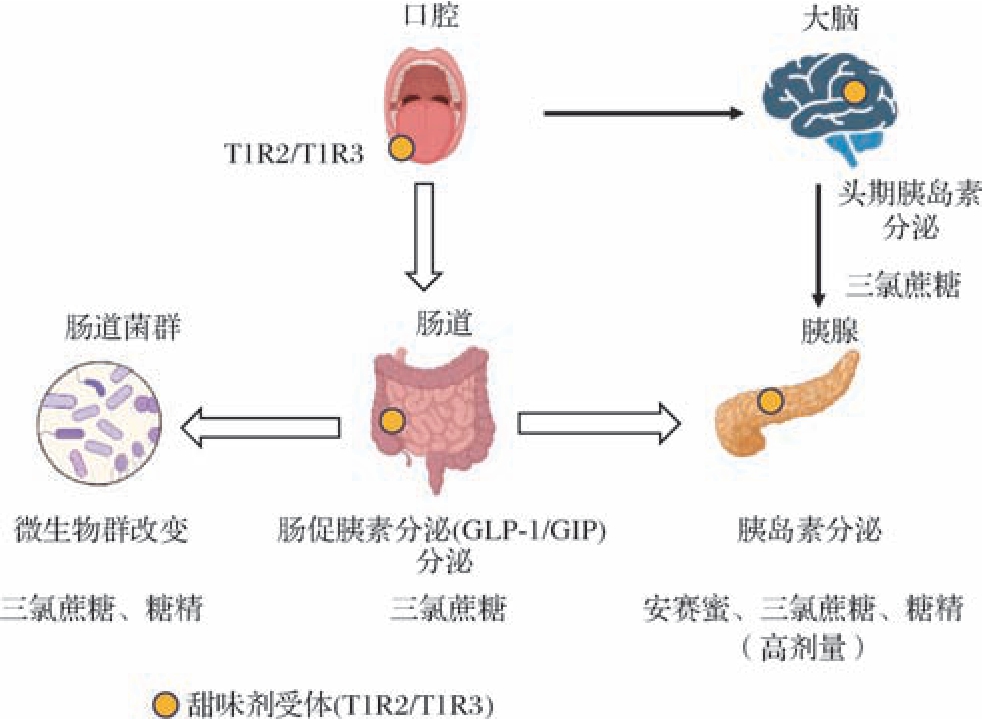
图1 人工甜味剂代谢调节通路示意图
Fig.1 Schematic diagram of metabolic regulation pathways for artificial sweeteners
4.1 肠道菌群紊乱
肠道菌群失衡诱发LPS 水平升高,改变了进入宿主循环的代谢物(如氨基酸、SCFAs 等)水平。 这些变化共同促进了全身性炎症和胰岛素敏感性下降,最终破坏了胰岛素信号传导和葡萄糖稳态[6,19]。
Suez 等[6] 设计了一项纳入120 名健康成年人(65%为女性,中位年龄29.95 岁,无糖尿病、近6 个月未摄入NNS)的随机对照试验,受试者每日分3 次服用含葡萄糖为填充剂的商业小袋(每日总计6袋),其中糖精组的每日摄入量为180 mg,三氯蔗糖组的每日摄入量为102 mg。 糖精和三氯蔗糖组干预期间(1 ~2 周)口服糖耐量曲线下面积(GTT-iAUC)与葡萄糖载体组和无补充剂组(对照)相比显著升高,显著损害了血糖反应[6]。 糖精组和三氯蔗糖组肠道菌群属水平组成显著改变,糖精组普雷沃氏菌(Prevotella copri)和嗜木聚糖拟杆菌(Bacteroides xylanisolvens)丰度上升,菌群紊乱直接导致了其代谢活动的变化,三氯蔗糖组升高的三羧酸循环(tricarboxylic acid cycle,TCA 循环)中间体和某些氨基酸可能直接干扰了肝脏的葡萄糖输出和肌肉、脂肪组织对葡萄糖的摄取利用,导致口服葡萄糖后血糖水平异常升高从而改变了进入宿主血液循环的代谢物水平,损害人体的血糖调节能力。 此研究虽未直接检测到胰岛素水平的显著变化,但代谢物的紊乱(如氨基酸失衡)常常与胰岛素敏感性下降(即胰岛素抵抗)相关联。 为了证明菌群改变是血糖受损的原因而非结果,进行了粪便微生物群移植(fecal microbiota transplantation,FMT)实验[6],将三氯蔗糖或糖精干预后“高反应者”的肠道菌群移植给无菌小鼠,受体小鼠出现与人类供体一致的血糖升高,糖精的菌群效应更强,即使“低反应者” 菌群移植后仍能升高小鼠血糖,证实菌群变化是代谢及血糖异常的关键中介[6]。
小鼠喂食0.3 mg/mL 糖精6 个月后,小鼠肠道中多个与炎症相关的菌属丰度发生改变。 棒状杆菌属(Corynebacterium)、罗斯氏菌属(Roseburia)、图利杆菌属(Turicibacter)丰度升高,瘤胃球菌属、阿德勒克鲁茨菌属(Adlercreutzia)、多雷亚菌属(Dorea)丰度下降,肝脏iNOS 和TNF-α 等促炎因子表达增加,病原体相关分子(如LPS 和细菌毒素)同源物水平增加[19],抗炎代谢物水平降低,导致代谢性内毒素血症,可能是非营养型人造甜味剂诱导肥胖和胰岛素抵抗的驱动因素。
4.2 肠促胰素分泌失调
肠道和胰腺中也存在甜味觉受体(T1R2/T1R3),在这些组织中,它们调节葡萄糖吸收和激素分泌,包括胰高血糖素样肽-1(glucagon-like peptide-1,GLP-1)和葡萄糖依赖性促胰岛素多肽(gastric inhibitory peptide,GIP),进而影响血糖稳态、胰岛素释放与食欲调控[38]。 用质量浓度为15 g/L 三氯蔗糖溶液喂养雄性Wistar 高脂饮食大鼠4 个月后,肠促胰素(GLP-1/GIP)分别增加至8.7、14.9 倍,这种肠促胰素的过度分泌引发了严重的高胰岛素血症[39];另一项随机交叉试验也发现,15 名受试者(未使用过且血糖正常的健康志愿者)服用含有200 mg 三氯蔗糖或安慰剂的药片4 周后,三氯蔗糖组活性GLP-1 的AUC 显著高于安慰剂组,胰岛素敏感性降低[40]。 但人体试验结果存在差异,一项纳入17 名健康受试者的干预实验显示,受试者连续2 周饮用阿斯巴甜(0.425 g,每日可接受摄入量ADI 的14%)或三氯蔗糖(0.136 g,每日可接受摄入量ADI 的20%),均未发现葡萄糖代谢显著受影响[41],这些差异可能与NNS 的剂量与暴露时长的差异、使用时长和个体差异(如基线菌群、遗传背景、饮食)以及研究方法的灵敏度相关。
4.3 食欲调节与奖赏机制
NNS 可通过激活味蕾上的G 蛋白偶联甜味受体(T1R2/T1R3)产生甜味感,但由于不提供能量,可能导致“甜味与能量”的解偶联。 这种解偶联可能干扰大脑的食欲调节和奖赏中枢,进而干扰头期胰岛素分泌,增加代谢性疾病风险[42]。 Frank 等[43]早期研究发现,当12 名健康女性分别摄入质量浓度为100 g/L 蔗糖与三氯蔗糖溶液后,两者激活的大脑味觉通路存在显著差异[43];Ko 等[44]进一步验证并拓展了这一发现,48 名健康年轻人(女性38 名,男性10 名)摄入三氯蔗糖10.5 mg/L 或蔗糖6 g/L,两者甜度等效,研究者通过功能磁共振成像(functional magenetic resonance imaging,fMRI)在摄入后的特定时间窗内进行观测,发现摄入等甜度的蔗糖相比,摄入三氯蔗糖后,大脑奖赏与内感受相关核心脑区(如岛叶、杏仁核)的神经激活模式呈现出显著差异,被试者对食物图片的神经反应更为强烈[44]。 这种反复发生的“甜味欺骗”可能降低机体对天然糖分的奖赏反应,诱发头部阶段胰岛素反应, 从而破坏能量调节并增加肥胖症风险[45]。
4.4 胰腺β 细胞异常刺激
人工甜味剂(如三氯蔗糖、糖精、安赛蜜)可激活胰腺β 细胞表面的甜味受体(T1R2/T1R3),促使胰岛素分泌,但缺乏实际葡萄糖摄入,导致代谢信号失调[46-47]。 低剂量人工甜味剂(50 μmol/L 糖精)未影响大鼠离体灌注胰腺的胰岛素分泌[48];然而高剂量人工甜味剂(50 mmol/L 糖精、50 mmol/L 三氯蔗糖或50 mmol/L 安赛蜜)可通过激活味觉受体信号通路增强胰岛素分泌[46]。 糖精(50 mmol/L)诱导细胞内环磷酸腺苷(cyclic adenosine monophosphate,cAMP)浓度持续升高,但未增加细胞内Ca2+ 浓度。 而三氯蔗糖(50 mmol/L)和安赛蜜(50 mmol/L)可快速持续地增加细胞内Ca2+ 浓度和cAMP 浓度[47]。 在MIN6细胞中,人工甜味剂的胰岛素分泌效力依次为:安赛蜜>糖精= 三氯蔗糖[49]。 此外,这些结果还表明人工甜味剂诱导的代谢表型可能取决于其摄入量,这与人类研究数据一致,由于摄入量远低于蔗糖,人工甜味剂可能不会影响胰岛素水平。
5 NNS 对心血管健康的影响及机制
心血管疾病(cardiovascular disease, CVD)的风险与代谢健康密切相关。 NNS 通过影响体重、血糖稳态和炎症,可能对心血管系统产生影响。 近年来,多项大规模前瞻性研究揭示了NNS 摄入与CVD 风险的关联。 一项基于法国 NutriNet-Santé 队列(2009—2021 年)的研究对近10 万名成年人(平均年龄42.2 岁,79.8%为女性)进行了长期追踪,研究通过重复的24 h 饮食记录精确量化了所有膳食来源的人工甜味剂总摄入量(平均15.76 mg/d)及其主要成分,包括阿斯巴甜(占比58%,平均9.13 mg/d)、安赛蜜(占比29%,平均4. 60 mg/d)和三氯蔗糖(占比10%,平均1.59 mg/d),总人工甜味剂摄入量与整体心血管疾病风险增加显著相关(HR =1. 09)。 进一步分析发现,风险存在特异性:阿斯巴甜的摄入主要与脑血管疾病风险升高相关(HR =1.17),而安赛蜜和三氯蔗糖则与冠心病风险增加相关(HR 分别为1.40和1.31)。 替代分析显示,用人工甜味剂替代添加糖并未降低心血管疾病风险[50]。 这一发现在8 万名绝经后美国女性健康倡议(Women’s Health Initiative,WHI)的研究中得到了佐证,每日饮用2 瓶或以上人工甜味剂饮料的女性,其中风、冠心病和全因死亡风险显著升高[51-52]。 此外,机制研究提供了更深层的生物学线索,在一项纳入4 000 余名成人的前瞻性研究中,发现血浆赤藓糖醇中每升高1 μmol/L,美国队列和欧洲队列中不良心血管事件(MACE,包括死亡、非致死性心肌梗死、卒中)风险增加21%和16%[53]。
NNSNNS 与CVD 风险的关联机制尚未完全阐明,当前研究推测其潜在介导路径可能包括代谢综合征介导和对于血管损伤和血小板的直接损伤(图2)。
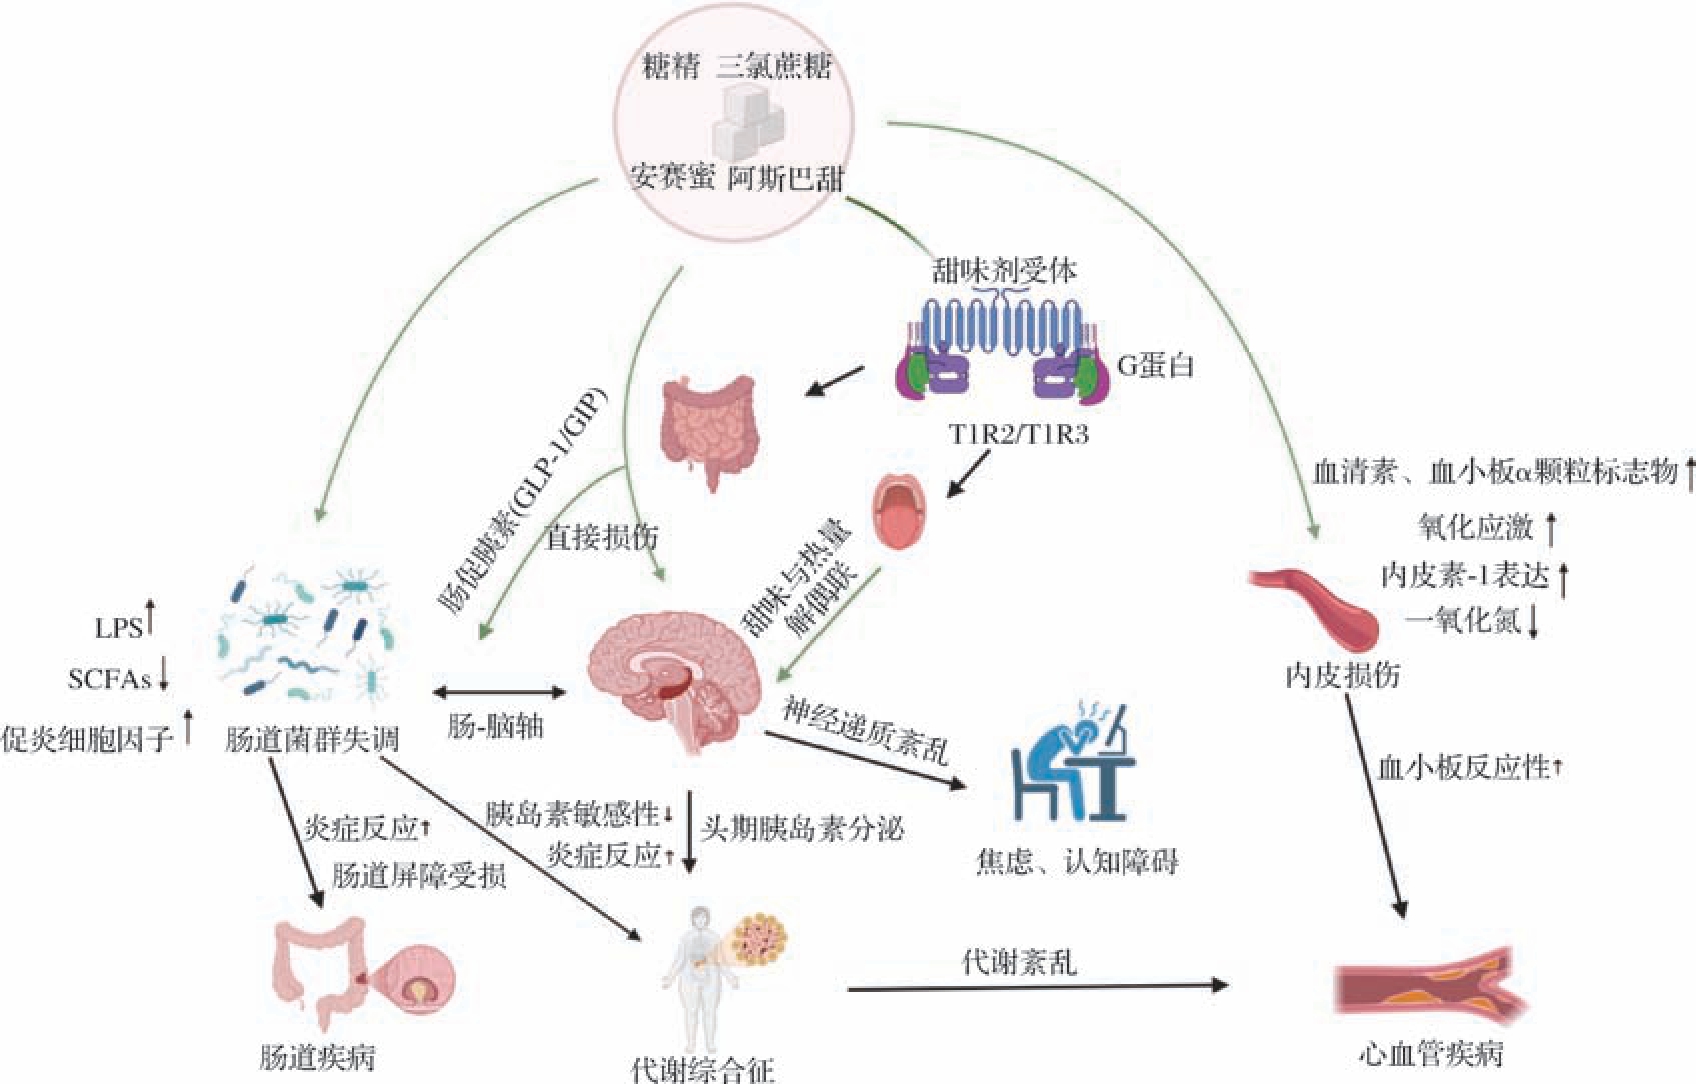
图2 NNS 健康风险机制图
Fig.2 Mechanism diagram of health risks associated with non-nutritive sweeteners
注:↑和↓分别表示升高和降低。
5.1 代谢综合征介导作用
代谢综合征(metabolic syndrome, MetS)包括一系列代谢紊乱,包括腹部肥胖、血压升高、葡萄糖耐受不良、胰岛素抵抗和血脂异常[54],可能增加一系列心血管结局的风险,如中风、冠心病和心力衰竭[55]。 一项研究基于对6 项前瞻性队列研究的系统评价和剂量反应Meta 分析,聚焦于成年人群(年龄≥18 岁),非营养型人工甜味剂饮料摄入与肥胖及高血压风险的关联,发现非营养型人工甜味剂的摄入与肥胖和高血压风险呈显著正相关。 每增加250 mL/d 的非营养型人工甜味剂摄入,肥胖风险升高21%[风险比为1.21,95%CI(置信区间)为1.09 ~1.35],高血压风险增加8%(风险比为1.08, 95%CI 为1.06 ~1.10)。 剂量反应关系分析表明,而人工甜味剂与肥胖为线性关联,与高血压则呈现非线性关联。 其中低剂量人工甜味剂( <150 mL/d)对高血压的风险提升更为显著。亚组分析进一步揭示,肥胖在非营养型人工甜味剂饮料摄入与高血压的关联中起部分中介作用调整身体质量指数(body mass index,BMI)后,非营养型人工甜味剂与高血压的关联强度均减弱[56]。 证实肥胖是重要的中间路径。 机制上,非营养型人工甜味剂饮料摄入可能通过促进体重增加、诱发胰岛素抵抗及炎症反应,共同推动肥胖和高血压的发生发展,进而影响心血管疾病的发生[56-58]。
5.2 血管内皮与血小板的直接损伤机制
近年来研究的多聚焦于糖醇类NNS 的直接心血管影响,其中赤藓糖醇的作用最为明确,其可直接作用于损伤血管内皮和血小板,增加CVD 风险。 单次口服30 g 赤藓糖醇,并在摄入后30 min 采血检测,发现摄入赤藓糖醇增加了血小板致密颗粒标志物血清素(TRAP6)和血小板α 颗粒标志物CXCL4(即血小板第4 因子)的刺激依赖性释放[59-60],增高健康志愿者血小板反应性,可能增加血栓形成风险;此外,赤藓糖醇还可损伤血管内皮功能,用6 mmol/L 赤藓糖醇[相当于人工甜味饮料中赤藓糖醇的典型含量(30 g)]培养人大脑微血管内皮细胞(human cerebral microvascular endothelial cells,hCMECs)3 h。 经赤藓糖醇处理的hCMECs 细胞内活性氧生成量显著升高,氧化应激增强,内皮型一氧化氮合酶活性下降,使一氧化氮(血管舒张因子)生成减少,促血栓形成;同时上调内皮素-1(血管收缩因子)表达,导致血管舒张功能受损。最终促进血栓形成及动脉粥样硬化进展[61-62]。
6 结论与展望
NNS 作为低热量糖替代品,已深度融入食品工业及日常饮食,其对宿主健康的影响呈现多维度、多途径的复杂特征,成为营养科学与病理生理学交叉领域的研究热点。 本综述系统梳理了其潜在作用机制(图2):在肠道层面,人工合成NNS(如糖精、三氯蔗糖)可诱导菌群失调(促炎菌增多、有益菌减少),并直接损伤肠上皮细胞紧密连接,破坏肠道屏障完整性,为炎症性肠病等疾病的发生发展奠定病理基础。在神经系统,NNS 不仅通过“肠-脑轴”扰动神经递质(如5-羟色胺、多巴胺)平衡,其本身或其代谢产物(如阿斯巴甜分解产生的苯丙氨酸)还能直接穿透血脑屏障,诱导神经炎症与细胞应激,与焦虑、记忆损伤等行为异常相关[30]。 在代谢与心血管系统,大规模人群队列研究证实,长期高剂量摄入特定人工NNS(如阿斯巴甜、安赛蜜、三氯蔗糖)与2 型糖尿病及心血管疾病风险升高存在显著关联,其机制交织着菌群紊乱、肠促胰素分泌异常、食欲奖赏调节失衡以及血管内皮功能损伤等多重路径。
当前研究仍存在诸多亟待解决的问题:人工合成与天然NNS 的生物学效应缺乏系统对比,天然NNS(如甜菊糖苷)的安全性与独特作用尚未明确;人体临床试验与动物实验、体外研究结果存在差异,短期干预与长期队列研究结论不一致[63-64];个体遗传背景、饮食模式对NNS 响应的调控机制尚不清晰,难以支撑个体化膳食指导。
为系统评估NNS 的长期健康效应并推动其精准应用,未来研究应聚焦于三大关键方向。 首要任务是开展大规模、长期的人群队列研究,结合宏基因组、代谢组与表观遗传等多组学技术,系统解析NNS 通过肠道菌群介导的间接效应及其对宿主代谢与神经系统的直接作用,从而厘清多通路交互机制,避免单一归因偏差。 其次,需加强对天然来源NNS(如甜菊糖苷、罗汉果苷)的独立、系统性毒理学与功能评估,明确其在神经行为、代谢稳态及心血管健康中的特异性效应,填补当前天然与人工NNS 比较研究的空白。最后,应深入探索宿主遗传背景、基线微生物群落结构及膳食模式等个体差异因素对NNS 效应的调控作用,构建基于人工智能的个体化风险预测模型。 为制定基于证据的膳食指南、规范NNS 在食品工业中的合理应用提供科学依据,最终实现NNS 从广泛使用到精准适用的范式转型,助力公共健康与食品安全战略的实施。
[1] Khan T A, Lee J J, Ayoub-Charette S, et al. WHO guideline on the use of non-sugar sweeteners:a need for reconsideration[J]. European Journal of Clinical Nutrition, 2023, 77(11):1009 -1013.
[2] Khan T A, Ayoub-Charette S, Sievenpiper J L. Non-nutritive sweeteners and health:reconciling evidence and interrogating guideline disconnects[J]. Advances in Nutrition, 2024, 15(12):100328.
[3] Edwards C H, Rossi M, Corpe C P, et al. The role of sugars and sweeteners in food, diet and health:alternatives for the future[J].Trends in Food Science & Technology, 2016, 56:158 -166.
[4] Merillon J M, Ramawat K G. Sweeteners:pharmacology, biotechnology, and applications[M]. Cham:Springer International Publishing, 2017.
[5] Hedrick V E, Nieto C, Grilo M F, et al. Non-sugar sweeteners:helpful or harmful? The challenge of developing intake recommendations with the available research[J]. BMJ, 2023, 383:e075293.
[6] Suez J, Cohen Y, Valdés-Mas R, et al. Personalized microbiomedriven effects of non-nutritive sweeteners on human glucose tolerance[J]. Cell, 2022, 185(18):3307 -3328.e19.
[7] Debras C, Deschasaux-Tanguy M, Chazelas E, et al. Artificial sweeteners and risk of type 2 diabetes in the prospective NutriNetsanté cohort[J]. Diabetes Care, 2023, 46(9):1681 -1690.
[8] Aguayo-Guerrero J A, Méndez-García L A, Solleiro-Villavicencio H, et al. Sucralose:from sweet success to metabolic controversiesunraveling the global health implications of a pervasive non-caloric artificial sweetener[J]. Life, 2024, 14(3):323.
[9] Mourad I M, Noor N A. Aspartame (a widely used artificial sweetener) and oxidative stress in the rat cerebral cortex[J]. International Journal of Pharmacy & Biomedical Sciences, 2011, 2:4 -10.
[10] Magnuson B A, Carakostas M C, Moore N H, et al. Biological fate of low-calorie sweeteners[J]. Nutrition Reviews, 2016, 74(11):670 -689.
[11] Weinborn V, Lehmkuhler A L, Zyba S J, et al. Measurement of saccharin and trans-resveratrol metabolites in urine as adherence markers for small quantity lipid-based nutrient supplement consumption[J]. Journal of Agricultural and Food Chemistry, 2021,69(3)1107 -1114
[12] Park Y L, Lee M S, Park S H. In vitro metabolism study of α-1,6-glucosylated steviol glycosides[J]. Food Science and Biotechnology, 2025, 34(15):3729 -3737.
[13] Xiao R M, Liao W C, Luo G J, et al. Modulation of gut microbiota composition and short-chain fatty acid synthesis by mogroside V in an in vitro incubation system[J]. ACS Omega, 2021, 6(39)25486 -25496.
[14] Younes M, Aquilina G, Castle L, et al. Re-evaluation of thaumatin (E 957) as food additive[J]. EFSA Journal, 2021, 19(11):e06884.
[15] Whitehouse C R, Boullata J, McCauley L A. The potential toxicity of artificial sweeteners[J]. AAOHN Journal,2008,56(6):251 -261.
[16] Rodriguez-Palacios A, Harding A, Menghini P, et al. The artificial sweetener splenda promotes gut proteobacteria, dysbiosis, and myeloperoxidase reactivity in Crohn’s disease-like ileitis[J]. Inflammatory Bowel Diseases, 2018, 24(5):1005 -1020.
[17] Gong L X, Wen T T, Wang J. Role of the microbiome in mediating health effects of dietary components[J]. Journal of Agricultural and Food Chemistry, 2020, 68(46)12820 -12835
[18] Bian X M, Chi L, Gao B, et al. Gut microbiome response to sucralose and its potential role in inducing liver inflammation in mice[J]. Frontiers in Physiology, 2017, 8:487.
[19] Bian X M, Tu P C, Chi L, et al. Saccharin induced liver inflammation in mice by altering the gut microbiota and its metabolic functions[J]. Food and Chemical Toxicology, 2017, 107:530 -539.
[20] Vamanu E, Pelinescu D, Gatea F, et al. Altered in vitro metabolomic response of the human microbiota to sweeteners[J]. Genes,2019, 10(7):535.
[21] Guo M R, Liu X R, Tan Y W, et al. Sucralose enhances the susceptibility to dextran sulfate sodium (DSS) induced colitis in mice with changes in gut microbiota[J]. Food & Function, 2021, 12(19):9380 -9390.
[22] Li X T, Liu Y L, Wang Y, et al. Sucralose promotes colitis-associated colorectal cancer risk in a murine model along with changes in microbiota[J]. Frontiers in Oncology, 2020, 10:710.
[23] Shil A, Olusanya O, Ghufoor Z, et al. Artificial sweeteners disrupt tight junctions and barrier function in the intestinal epithelium through activation of the sweet taste receptor, T1R3[J]. Nutrients, 2020, 12(6):1862.
[24] Shil A, Ladeira Faria L M, Walker C A, et al. The artificial sweetener neotame negatively regulates the intestinal epithelium directly through T1R3-signaling and indirectly through pathogenic changes to model gut bacteria[J]. Frontiers in Nutrition, 2024,11:1366409.
[25] Gonçalves N G, Martinez-Steele E, Lotufo P A, et al. Association between consumption of low- and No-calorie artificial sweeteners and cognitive decline:an 8-year prospective study[J]. Neurology,2025, 105(7):e214023.
[26] Morales-Ríos E I, García-Machorro J, Briones-Aranda A, et al.Effect of long-term intake of nutritive and non-nutritive sweeteners on metabolic health and cognition in adult male rats[J]. Journal of Medicinal Food, 2022, 25(11):1059 -1065.
[27] Brown R J, Rother K I. Non-nutritive sweeteners and their role in the gastrointestinal tract[J]. The Journal of Clinical Endocrinology and Metabolism, 2012, 97(8):2597 -2605.
[28] Harika R, Vasantharekha R, Reddy S S, et al. Sweetener synapse:exploring non-nutritive sweeteners'role in zebrafish glucose homeostasis[J]. Environmental Technology and Innovation,2025,39:104322.
[29] Barton J R, Londregan A K, Alexander T D, et al. Enteroendocrine cell regulation of the gut-brain axis[J]. Frontiers in Neuroscience, 2023, 17:1272955.
[30] Che G J, Liu L, Li L T, et al. “Sugar-free” trap:artificial sweetener acesulfame induced anxiety-like behavior in Sebastes schlegelii via disturbing bidirectional microbiota - neurotransmitter interactions[J]. Environmental Chemistry and Ecotoxicology, 2025, 7:1991 -2004.
[31] Pietz J, Kreis R, Rupp A, et al. Large neutral amino acids block phenylalanine transport into brain tissue in patients with phenylketonuria[J]. The Journal of Clinical Investigation, 1999, 103(8):1169 -1178.
[32] Bai H J, Zuo X, Zhao C T, et al. Non-nutritive sweetener aspartame disrupts circadian behavior and causes memory impairment in mice[J]. Journal of Agricultural and Food Chemistry, 2024, 72(42)23478 -23492.
[33] Rosa É V F, Da Silveira A R, Sari M H M, et al. Beta-caryophyllene mitigates the cognitive impairment caused by repeated exposure to aspartame in rats:putative role of BDNF-TrKB signaling pathway and acetylcholinesterase activity[J]. Behavioural Brain Research, 2023, 453:114615.
[34] Hacioglu C. Long-term exposure of sucralose induces neuroinflammation and ferroptosis in human microglia cells via SIRT1/NLRP3/IL-1β/GPx4 signaling pathways[J]. Food Science & Nutrition,2024, 12(11):9094 -9107.
[35] Tkach V V, Morozova T V, Gaivão I O M, et al. Sucralose:a review of environmental, oxidative and genomic stress[J]. Nutrients, 2025, 17(13):2199.
[36] Jin S W, Wang X L, Wang J, et al. SIRT1 downregulation contributes to surgery-induced cognitive impairment through autophagymediated NLRP3 inflammasome activation in the hippocampi of aged mice[J/OL]. Research Square, 2023. https:/ /doi.org/10.21203/rs.3.rs-3338315/v1.
[37] Park S, Sethi S, Bouret S G. Non-nutritive sweeteners induce hypothalamic ER stress causing abnormal axon outgrowth[J]. Frontiers in Endocrinology, 2019, 10:876.
[38] Steinert R E, Gerspach A C, Gutmann H, et al. The functional involvement of gut-expressed sweet taste receptors in glucose-stimulated secretion of glucagon-like peptide-1 (GLP-1) and peptide YY (PYY)[J]. Clinical Nutrition, 2011, 30(4):524 -532.
[39] Sánchez-Tapia M, Martínez-Medina J, Tovar A R, et al. Natural and artificial sweeteners and high fat diet modify differential taste receptors, insulin, and TLR4-mediated inflammatory pathways in adipose tissues of rats[J]. Nutrients, 2019, 11(4):880.
[40] Lertrit A, Srimachai S, Saetung S, et al. Effects of sucralose on insulin and glucagon-like peptide-1 secretion in healthy subjects:a randomized, double-blind, placebo-controlled trial[J]. Nutrition,2018, 55:125 -130.
[41] Ahmad S Y, Friel J K, MacKay D S. The effect of the artificial sweeteners on glucose metabolism in healthy adults:a randomized,double-blinded, crossover clinical trial[J]. Physiologie Appliquee, Nutrition et Metabolisme, 2020, 45(6):606 -612.
[42] Hao S, Guthrie B, Kim S K, et al. Steviol rebaudiosides bind to four different sites of the human sweet taste receptor (T1R2/T1R3) complex explaining confusing experiments[J]. Communications Chemistry, 2024, 7:236.
[43] Frank G K W, Oberndorfer T A, Simmons A N, et al. Sucrose activates human taste pathways differently from artificial sweetener[J]. NeuroImage, 2008, 39(4):1559 -1569.
[44] Ko H K, Shi J G, Eidenberger T, et al. Human brain responses to the artificial sweetener sucralose and sucrose in the presence of flavour modifier[J]. Nutritional Neuroscience,2025,28(10):1243 -1254.
[45] Swithers S E, Martin A A, Clark K M, et al. Body weight gain in rats consuming sweetened liquids. Effects of caffeine and diet composition[J]. Appetite, 2010, 55(3):528 -533.
[46] Nakagawa Y, Nagasawa M, Mogami H, et al. Multimodal function of the sweet taste receptor expressed in pancreatic β-cells:generation of diverse patterns of intracellular signals by sweet agonists[J]. Endocrine Journal, 2013, 60(10):1191 -1206.
[47] Nakagawa Y, Nagasawa M, Yamada S, et al. Sweet taste receptor expressed in pancreatic β-cells activates the calcium and cyclic AMP signaling systems and stimulates insulin secretion[J]. PLoS One, 2009, 4(4):e5106.
[48] Usami M, Seino Y, Takai J, et al. Effect of cyclamate sodium,saccharin sodium and stevioside on arginine-induced insulin and glucagon secretion in the isolated perfused rat pancreas[J]. Hormones et Metabolisme, 1980, 12(12):705 -706.
[49] Iizuka K. Is the use of artificial sweeteners beneficial for patients with diabetes mellitus? The advantages and disadvantages of artificial sweeteners[J]. Nutrients, 2022, 14(21):4446.
[50] Debras C, Chazelas E, Sellem L, et al. Artificial sweeteners and risk of cardiovascular diseases:results from the prospective Nutri-Net-Santé cohort[J]. Bmj, 2022, 378:e071204.
[51] Mossavar-Rahmani Y, Kamensky V, Manson J E, et al. Artificially sweetened beverages and stroke, coronary heart disease, and allcause mortality in the women’ s health initiative[J]. Stroke,2019, 50(3):555 -562.
[52] Mullee A, Romaguera D, Pearson-Stuttard J, et al. Association between soft drink consumption and mortality in 10 European countries[J]. JAMA Internal Medicine, 2019, 179(11):1479 -1490.
[53] Witkowski M, Nemet I, Alamri H, et al. The artificial sweetener erythritol and cardiovascular event risk [J]. Nature Medicine,2023, 29(3):710 -718.
[54] Grundy S M, Cleeman J I, Daniels S R, et al. Diagnosis and management of the metabolic syndrome:an American Heart Association/National Heart, Lung, and Blood Institute scientific statement:executive summary[J]. Critical Pathways in Cardiology,2005, 4(4):198 -203.
[55] Tune J D, Goodwill A G, Sassoon D J, et al. Cardiovascular consequences of metabolic syndrome [J]. Translational Research,2017, 183:57 -70.
[56] Meng Y T, Li S Q, Khan J, et al. Sugar- and artificially sweetened beverages consumption linked to type 2 diabetes, cardiovascular diseases, and all-cause mortality:a systematic review and doseresponse meta-analysis of prospective cohort studies[J]. Nutrients,2021, 13(8):2636.
[57] Azad M B, Abou-Setta A M, Chauhan B F, et al. Nonnutritive sweeteners and cardiometabolic health:a systematic review and meta-analysis of randomized controlled trials and prospective cohort studies[J]. Canadian Medical Association Journal, 2017, 189(28):E929 -E939.
[58] Liauchonak I, Qorri B, Dawoud F, et al. Non-nutritive sweeteners and their implications on the development of metabolic syndrome[J]. Nutrients, 2019, 11(3):644.
[59] Witkowski M, Wilcox J, Province V, et al. Ingestion of the nonnutritive sweetener erythritol, but not glucose, enhances platelet reactivity and thrombosis potential in healthy volunteers:brief report[J]. Arteriosclerosis, Thrombosis, and Vascular Biology,2024, 44(9):2136 -2141.
[60] Rizas K D, Sams L E, Massberg S. Non-nutritional sweeteners and cardiovascular risk[J]. Nature Medicine,2023,29(3):539 -540.
[61] Berry A R, Ruzzene S T, Ostrander E I, et al. The non-nutritive sweetener erythritol adversely affects brain microvascular endothelial cell function[J]. Journal of Applied Physiology (Bethesda,Md., 2025, 138(6):1571 -1577.
[62] Lim J, Hong H G, Huang J Q, et al. Serum erythritol and risk of overall and cause-specific mortality in a cohort of men[J]. Nutrients, 2024, 16(18):3099.
[63] Ahmad S Y, Friel J, MacKay D. The effects of non-nutritive artificial sweeteners, aspartame and sucralose, on the gut microbiome in healthy adults:secondary outcomes of a randomized double-blinded crossover clinical trial[J]. Nutrients, 2020, 12(11):3408.
[64] Thomson P, Santibañez R, Aguirre C, et al. Short-term impact of sucralose consumption on the metabolic response and gut microbiome of healthy adults[J]. The British Journal of Nutrition, 2019,122(8):856 -862.