黄酮类化合物以其特征的C6-C3-C6 为基本骨架,目前已发现数千种结构变体,涵盖黄酮(flavone)、黄酮醇(flavonol)、二氢黄酮(dihydroflavone)、异黄酮(isoflavone)、黄烷醇(flavanol)、花色素(anthocyanidins)及非黄酮(nonflavonoids)等。 这类化合物表现出抗菌、免疫调节,抗衰老、抗病毒、抗癌等多种生理活性,在食品与医药领域应用前景广阔。 天然黄酮类物质大多以糖苷形式存在,经口服进入人体后仅极少量能被吸收[1],这一问题严重限制了其实际应用价值。 因此,借助微生物及其酶系统对黄酮结构进行修饰成为当前研究的热点与潜在的有效策略。 与化学法修饰方法相较,微生物转化方法具有反应条件温和、选择性强且环境友好等显著优势(图1)。 当前相关研究趋势已经不再局限于对转化现象的表面观察,而是深入到对酶催化机制及其遗传调控网络的深度解析。 已有多项研究指出微生物可通过分泌β-葡萄糖苷酶、β-葡萄糖醛酸苷酶、α-鼠李糖苷酶及酯酶等多种酶类实现对黄酮类底物进行水解、开环、脱羟基等多种结构修饰。 因此,系统揭示转化途径与功能活性提升之间的内在关联,是推动该领域发展的关键。

图1 微生物转化提升黄酮类化合物生物利用度与生物活性的概念框架
Fig.1 A conceptual framework illustrating the enhancement of bioavailability and bioactivity of flavonoids via microbial transformation
1 异黄酮类化合物的微生物转化
1.1 转化的一般特征与共性机制
大豆异黄酮、染料木素、葛根素等异黄酮类化合物在自然界中主要以糖苷形式存在,导致其口服生物利用度普遍较低。 该类化合物的微生物转化遵循一条共性核心路径:首先由微生物分泌的β-葡萄糖苷酶介导去糖基化反应,释放出生理活性更高的苷元;随后,苷元可被特定菌群通过还原、开环、羟基化等途径进一步修饰,生成一系列结构多样、活性增强的代谢产物(表1)。 其中,源自大豆苷元的S-雌马酚因其卓越的雌激素样活性和抗氧化能力,成为诠释微生物转化实现功能增效的经典范例,其核心转化路径如图2所示。
表1 不同类型黄酮化合物微生物转化特性比较
Table 1 Comparison of microbial transformation characteristics across different types of flavonoids
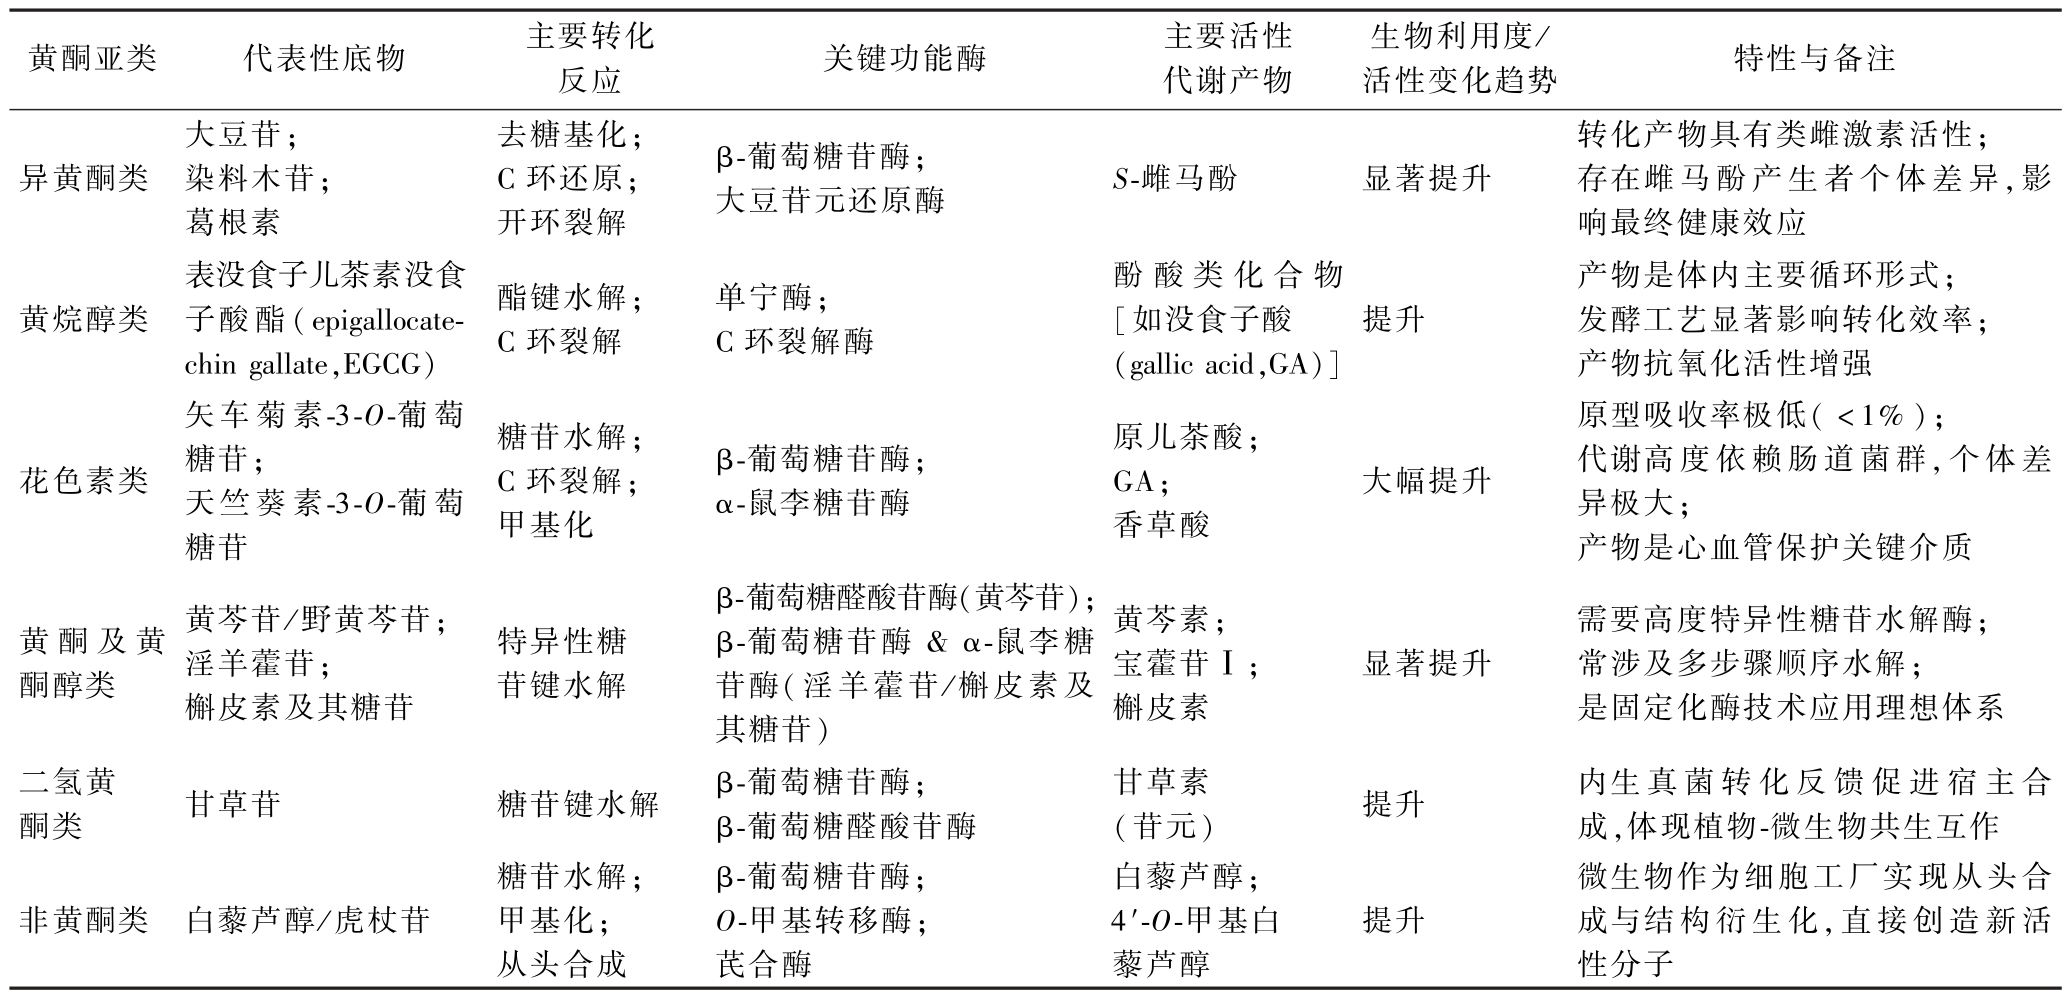
黄酮亚类代表性底物主要转化反应关键功能酶主要活性代谢产物生物利用度/活性变化趋势特性与备注异黄酮类大豆苷;染料木苷;葛根素去糖基化;C 环还原;开环裂解β-葡萄糖苷酶;大豆苷元还原酶S-雌马酚显著提升转化产物具有类雌激素活性;存在雌马酚产生者个体差异,影响最终健康效应黄烷醇类表没食子儿茶素没食子酸酯(epigallocatechin gallate,EGCG)酯键水解;C 环裂解单宁酶;C 环裂解酶酚酸类化合物[如没食子酸(gallic acid,GA)]提升产物是体内主要循环形式;发酵工艺显著影响转化效率;产物抗氧化活性增强花色素类矢车菊素-3-O-葡萄糖苷;天竺葵素-3-O-葡萄糖苷糖苷水解;C 环裂解;甲基化β-葡萄糖苷酶;α-鼠李糖苷酶原儿茶酸;GA;香草酸大幅提升原型吸收率极低( <1%);代谢高度依赖肠道菌群,个体差异极大;产物是心血管保护关键介质黄酮及黄酮醇类黄芩苷/野黄芩苷;淫羊藿苷;槲皮素及其糖苷特异性糖苷键水解β-葡萄糖醛酸苷酶(黄芩苷);β-葡萄糖苷酶& α-鼠李糖苷酶(淫羊藿苷/槲皮素及其糖苷)需要高度特异性糖苷水解酶;常涉及多步骤顺序水解;是固定化酶技术应用理想体系二氢黄黄芩素;宝藿苷Ⅰ;槲皮素显著提升酮类甘草苷糖苷键水解β-葡萄糖苷酶;β-葡萄糖醛酸苷酶(苷元)提升内生真菌转化反馈促进宿主合成,体现植物-微生物共生互作甘草素非黄酮类 白藜芦醇/虎杖苷糖苷水解;甲基化;从头合成β-葡萄糖苷酶;O-甲基转移酶;芪合酶白藜芦醇;4′-O-甲基白藜芦醇提升微生物作为细胞工厂实现从头合成与结构衍生化,直接创造新活性分子
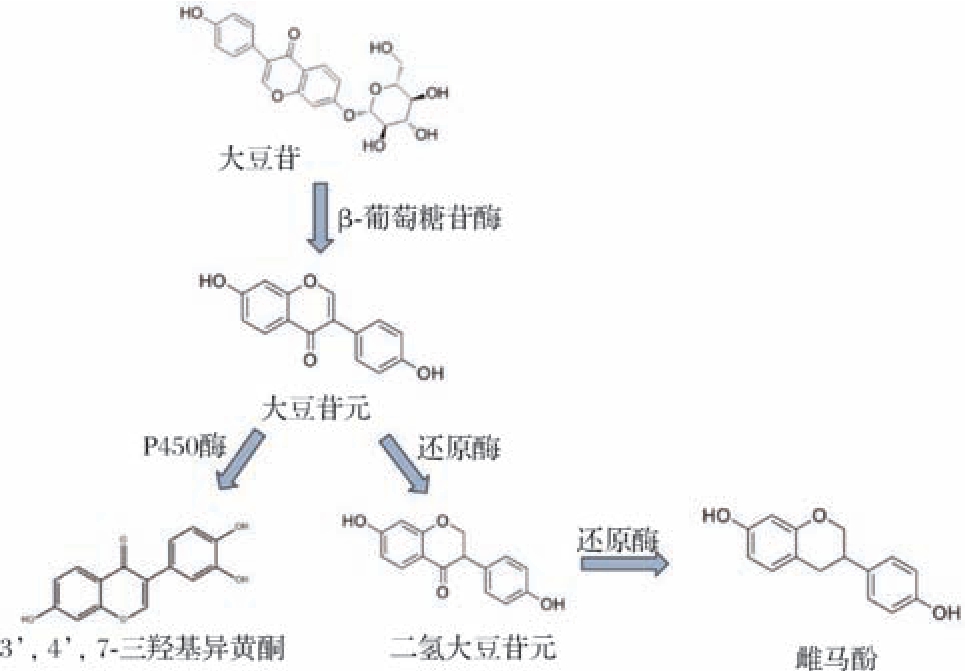
图2 异黄酮类化合物微生物转化的核心路径
Fig.2 Core pathway of microbial transformation for isoflavonoids
1.2 代表性途径与分子机制:以大豆异黄酮为例
大豆异黄酮(主要包括大豆苷和染料木苷)是该类化合物中被研究最为深入的体系,其转化机制完整地体现了上述共性规律。
1.2.1 转化途径与活性提升
大豆异黄酮在天然状态下主要呈β-葡萄糖苷形式存在。 肠道中拟杆菌门(Bacteroidetes)、厚壁菌门(Firmicutes)中的乳酸杆菌(Lactobacillus)、双歧杆菌(Bifidobacterium)等微生物,因携带编码β-葡萄糖苷酶基因,可高效水解大豆异黄酮的糖苷键,释放出大豆苷元、染料木素等苷元形式[2]。 有研究证实,使用蛋白酶、单宁酶和纤维素酶的单独或混合使用水解已被证明能将糖苷型异黄酮水解率提升至80%以上,大幅提高苷元浓度[3]。 苷元可被特定肠道菌群进一步修饰,代谢路径的差异决定了最终产物的活性:部分菌株将其还原为二氢大豆苷元;另一些菌株则能通过复杂的还原与去酮基功能,将其高效转化为雌马酚;还有菌群可催化开环反应生成其他结构产物[4]。 大豆苷元经肠道菌群作用代谢转化生成的雌马酚,这种物质体外抗氧化活性远远高于大豆苷元,可高达100 倍[5]。 此外,链霉菌(Streptomyces)、黑曲霉(Aspergillus)等菌株可通过其细胞色素P450 单加氧酶全细胞催化羟基化反应,将大豆苷元转化为3′,4′,7-三羟基异黄酮等活性更高的衍生物[6]。
1.2.2 关键酶系与合成生物学应用
大豆异黄酮转化途径的精确性,依赖于关键酶系催化特性及其基因编码。 β-葡萄糖苷酶作为启动转化的核心酶系,底物专一性较宽,能作用于多种糖苷键。 雌马酚合成路径中涉及了多个还原酶参与的级联反应,包括黄豆苷元还原酶、二氢黄豆苷元还原酶、四氢黄豆苷元还原酶和二氢消旋酶。 这些酶的协同作用是高效合成雌马酚的关键所在。 其中,二羟基豆苷元还原酶是催化(S)-赤藓酮糖合成的限速酶。 通过对该酶结合口袋进行理性设计以减少空间位阻,研究者获得了高效突变体S118G/T169A。 计算分析表明,其活性提升源于关键催化距离的缩短和相互作用构象的稳定。 应用该突变体的全细胞催化剂,能将2 mmol/L 大豆苷元转化为(S)-赤藓糖醇,转化率达84.5%,较野生型提高2.9 倍[7]。 为解决天然雌马酚产生菌严格厌氧菌的工业瓶颈,研究进一步采用合成生物学策略进行系统优化。 通过筛选高效豆甾醇还原酶、重构NADPH 辅因子库、并精细调控通路基因表达,成功平衡了级联反应。 经发酵条件优化,最终在5 L 生物反应器中实现了(S)-雌马酚的高效合成,产量达3 418.5 mg/L,转化率约85.9%,奠定了一条绿色生产工艺路线[8]。 依托于这些基因资源,借助合成生物学的设计构建使能完整执行雌马酚合成途径的人工基因线路成为可能。 将这类基因路线与益生菌结合可开发出能定向增强大豆异黄酮健康效应的新一代益生菌株。 同时,通过蛋白质工程技术改造P450 单加氧酶等关键酶,有望进一步提升羟基化等反应选择性和效率,为创造结构新颖、活性更强的黄酮衍生物开辟新道路。
2 黄烷醇类化合物的微生物转化
2.1 转化共性:酯键水解与C 环裂解
以儿茶素为代表的黄烷醇类化合物广泛存在于茶叶、可可等植物中,是具有黄烷-3-醇骨架的一类重要多酚。 其生物利用度常受酯化或聚合形态的限制。该类化合物的微生物转化存在显著的共性:核心步骤通常是酯键的水解和随后的C 环裂解。 前者释放出简单的黄烷醇单元和酚酸,后者则将黄烷醇骨架开环,转化为一系列分子质量更小、肠道吸收率更高的酚酸类代谢物(表1)。 这些转化普遍显著提升了原形化合物的生物利用度与生物活性,该共性路径如图3 所示[以EGCG 为例]。
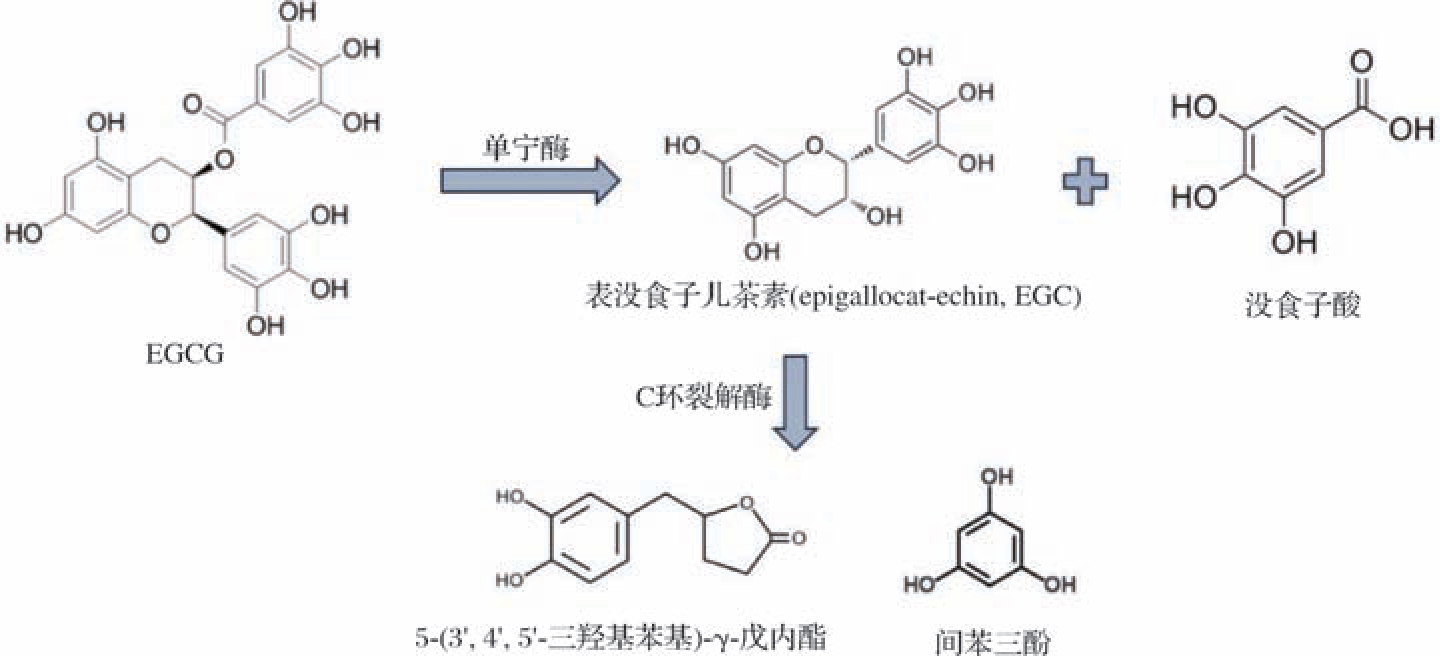
图3 黄烷醇类化合物微生物转化的核心路径
Fig.3 Core pathway of microbial transformation for flavanols
2.2 代表性途径与分子机制:EGCG 等儿茶素为例
儿茶素,尤其是EGCG,是茶多酚的核心活性成分,也是阐明黄烷醇类微生物转化机制的经典模型。
2.2.1 转化途径与活性提升
EGCG 虽活性强,但生物利用度低。 以黑曲霉为代表的真菌能通过分泌单宁酶,将EGCG 特异性水解为EGC 和GA。 随后,EGC 和EC 的黄烷-3-醇骨架在C 环裂解酶催化下开环生成多种小分子酚酸[9]。 人体研究证实,这些代谢物正是人体摄入茶多酚后在循环系统中的主要形式。 茯砖茶发酵过程中儿茶素含量下降58.83%,而GA 含量上升58.48%,这一实验现象直接验证该转化途径的真实性[10]。 转化后产物表现出增强的生物活性。 发酵产物DPPH 自由基清除率最高可达88. 98%,显示其抗氧化能力得到增强[11];在抗炎方面,儿茶素代谢物可调节巨噬细胞中AMPK/SIRT1 等信号通路,上调白细胞介素(interleukin,IL)-4、IL-10 等抗炎因子表达,下调IL-16、IL-12B等促炎因子水平,从而发挥免疫调节作用。 值得注意的是,不同个体肠道微生物组成存在差异会明显影响儿茶素的代谢效率,进而影响其最终发挥健康功效[9],这一发现为个性化营养干预方案的制定提供了理论依据。
2.2.2 关键转化酶与工程化策略
儿茶素微生物转化效率与特异性,由关键酶系及其基因调控网络共同决定。 单宁酶作为启动酯型儿茶素转化的关键限速酶,C 环裂解酶则负责生成生物利用度高的小分子酚酸。 研究证实,黑曲霉RAF106在EGCG 诱导下能特异性分泌单宁酶,其该酶的活性与儿茶素转化效率呈正相关。 来源于黑曲霉的儿茶素转化酶系表达受到复杂调控网络影响,其中Cdc42-Ste11-Fus3 MAPK 信号通路在EGCG 诱导酶表达中起关键调控作用。 同时,碳氮源通过碳代谢阻遏效应调控单宁酶活性,葡萄糖对该酶活性表现出抑制效应,而乳糖具有促进作用[11]。 在细菌体系中,酯酶基因表达受到双组分系统NtrB/C 直接调控,且通过Gac/Rsm 信号转导系统进行精细调节[12]。 基于这些已知机制,已有研究者尝试利用合成生物学方法构建高效工程菌。 将黑曲霉来源的单宁酶及C 环裂解酶编码基因在毕赤酵母等安全宿主中实现异源表达,为儿茶素定向转化为特定高活性代谢物奠定了基础[13]。 未来可通过多组学技术解析完整转化途径,将促进新一代功能性茶制品的设计与开发。
3 花色素类化合物的微生物转化
3.1 转化路径的共性与多样性
花色素亦称花青素,是赋予果蔬鲜艳色彩水溶性色素,典型代表包括矢车菊素、天竺葵素和飞燕草素等。 在自然界中主要以花色苷形式存在。 这类物质虽具有抗氧化、抗癌和神经保护活性,但口服生物利用度极低。 其微生物转化核心共性是:依赖肠道菌群分泌β-葡萄糖苷酶、α-鼠李糖苷酶等糖苷水解酶切除糖基,释放生物活性更强的苷元[14],这些苷元可进一步经微生物酶系催化发生C 环裂解和脱羟基化等反应,生成原儿茶酸、GA、香草酸等小分子酚酸[15](表1)。 然而,由于不同花色素苷元B 环羟基化程度和甲基化状态差异,其具体裂解位点和终产物也呈现多样性,这直接关联于其各异的功能活性,其代表性转化路径如图4 所示。
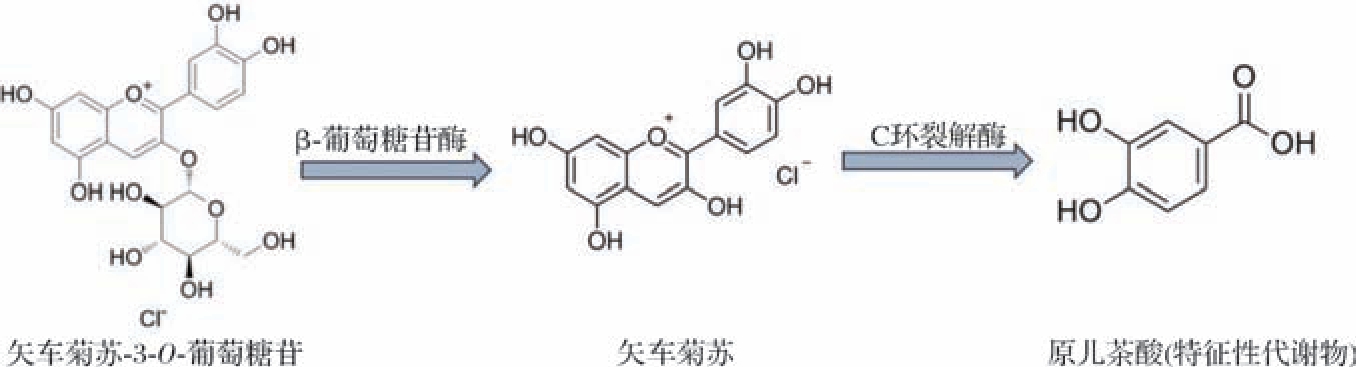
图4 花色素类化合物微生物转化的核心路径
Fig.4 Core pathway of microbial transformation for anthocyanins
3.2 核心机制与代表性代谢:以矢车菊素-3-O-葡萄糖苷为例
矢车菊素-3-O-葡萄糖苷是自然界中含量最丰富、研究较多花色素苷之一,其转化路径清晰地诠释了该共性机制。
3.2.1 转化途径与活性提升
矢车菊素-3-O-葡萄糖苷仅有约1% 原型化合物进入全身循环系统[16],在肠道菌群作用下可转化为原儿茶酸,含量可达摄入花青素总量的73%,成为人体内最主要的花青素代谢物[16]。 转化后代谢物不仅生物利用度提高,生物活性也发生重要变化。 原儿茶酸能通过减少miR-10b 表达、增加ATP 结合蛋白A1/G1表达等机制发挥心血管保护作用;GA 则通过激活PI3K/Akt/GSK-3β 信号通路调节一氧化氮合酶生成,促进血管舒张[15]。 此外,这些代谢物还表现出良好肠道菌群调节能力,可选择性地促进罗氏菌属等有益菌生长,抑制普雷沃菌属等条件致病菌,形成正向调控循环[17]。
3.2.2 关键转化酶与代谢调控
除常见的β-葡萄糖苷酶外,α-鼠李糖苷酶在含鼠李糖的锦葵色素-3-芦丁糖苷转化中发挥关键作用[13]。 花色素的吸收过程涉及多种转运蛋白,包括胃部葡萄糖转运蛋白 GLUT1/GLUT3, 以及小肠SGLT1 和GLUT2[13]。 不同糖基化形式的花青素吸收效率差异清晰,吸收葡萄糖苷能力优于半乳糖苷,而聚合花青素生物利用度仅为单体10% 左右[13]。 花青素与肠道微生物存在独特的双向调控机制。 一方面,微生物酶系转化花青素生成活性代谢物;另一方面,这些代谢物能选择性调节肠道菌群结构,如原儿茶酸可增加双歧杆菌和乳酸杆菌丰度,GA 则与阿克曼菌增殖密切相关[18]。 这种双向作用通过短链脂肪酸-AMPK 信号轴和胆汁酸-FXR/TGR5 通路共同调节宿主能量代谢和炎症状态[18]。 花青素代谢效率存在明显个体差异,年龄、肠道菌群基线组成、遗传背景等多因素均会产生影响。 有研究指出蓝莓干预可增加老年女性肠道微生物多样性,但在年轻群体中效果不显著,凸显出个性化干预的必要性[19]。 未来研究应聚焦于花青素代谢表型分型,结合多组学技术鉴定关键功能菌株和代谢标志物,为开发基于花青素精准营养干预策略提供理论基础。
4 其他黄酮类化合物的微生物转化
4.1 转化的共性特征与核心机制
尽管黄酮、黄酮醇与二氢黄酮在骨架饱和度、羟基化模式上存在差异,但其天然产物大多以O-糖苷或C-糖苷形式存在,这一结构共性导致了相同应用瓶颈——口服生物利用度极低。 因此,针对该类化合物的微生物增效转化,其核心策略高度一致:利用微生物分泌的特异性糖苷水解酶,切除糖基配体,释放活性苷元(图5)。 这一过程是提升其生物利用度的关键限速步骤。 然而,葡萄糖苷、鼠李糖苷、葡萄糖醛酸苷等糖苷类型的多样性要求微生物酶系具备高度的底物特异性。 例如,水解黄酮-7-O-葡萄糖苷需要常见的β-葡萄糖苷酶,水解黄酮醇-3-O-鼠李糖苷则需要α-鼠李糖苷酶先行作用,而水解黄芩苷等含葡萄糖醛酸的苷元则需要β-葡萄糖醛酸苷酶。 此外,对于像甘草苷这样的C-糖苷,其糖苷键更为稳定,需要特异性更强的C-糖苷酶参与。 这种一种糖苷键对应一类或一种关键水解酶的特异性关系,构成了此类转化分子机制复杂性与精准性的基础(表1)。 基于此核心策略,下文将分别以黄酮/黄酮醇类以及二氢黄酮类中的代表性物质为例,阐述其具体的转化途径与增效机制。
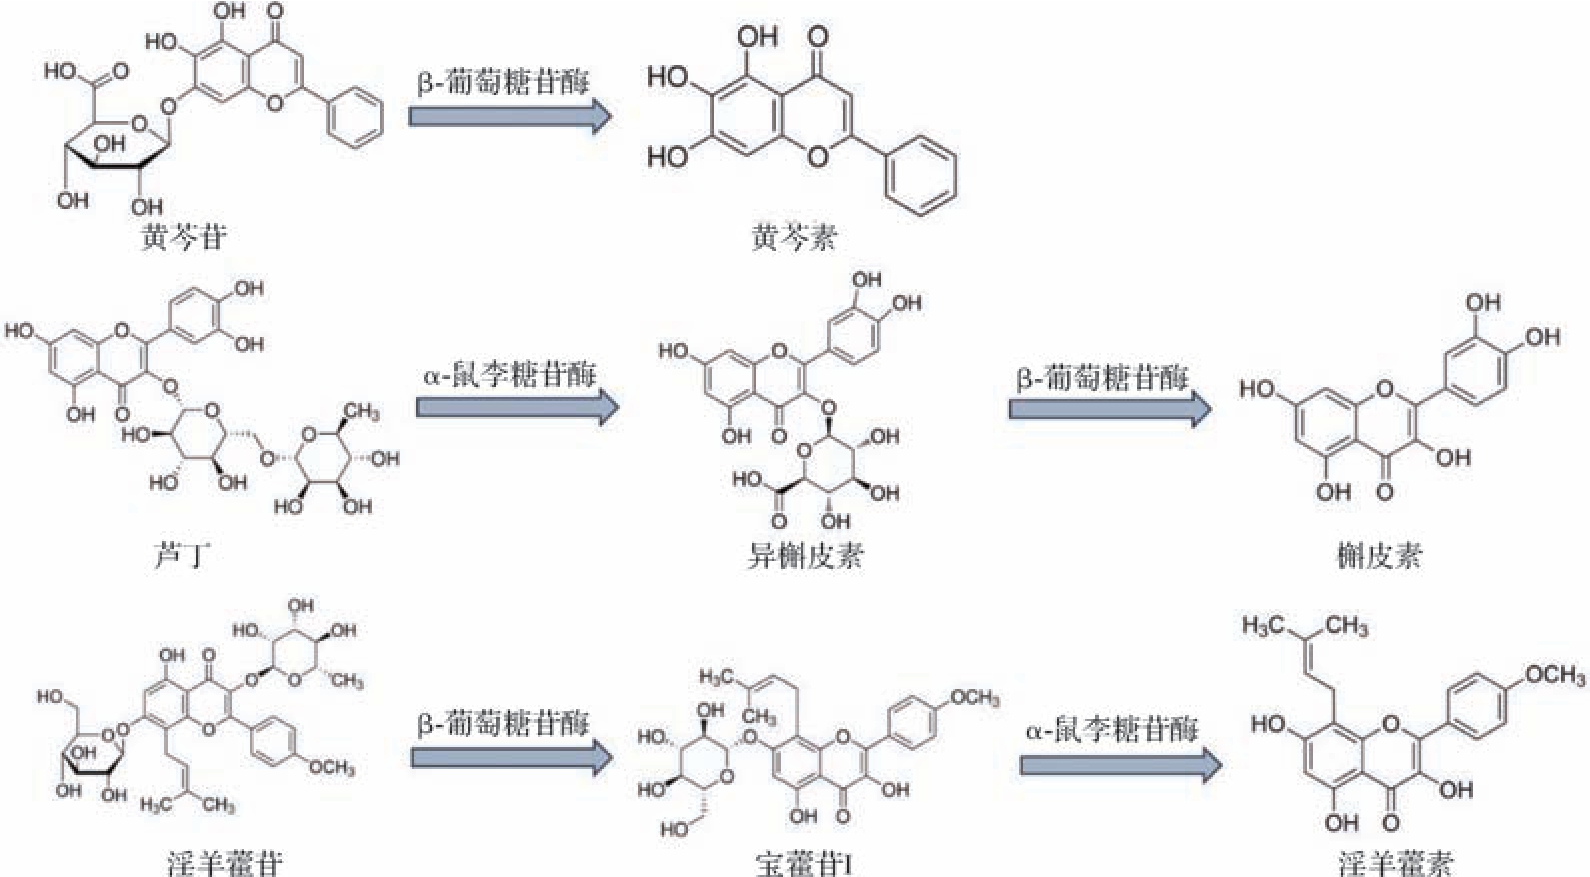
图5 黄酮及黄酮醇类化合物微生物转化的核心策略
Fig.5 Core strategy for microbial transformation of flavonoids and flavonols
4.2 黄酮与黄酮醇类化合物的转化
4.2.1 黄芩苷的微生物转化
黄芩富含黄酮类化合物,尤其以黄芩素、黄芩苷等含有生物活性的4′-去氧黄酮类化合物而闻名,其生物合成途径已得到初步阐明[20]。 在微生物转化方面,研究聚焦于其糖苷键的水解。 不同微生物菌株的转化效率存在明显差异,黑曲霉、米曲霉、木霉和根霉对野黄芩苷转化率分别为60%、81%、86%、99.1%,这种差异主要源于各菌株β-葡萄糖醛酸苷酶空间构象和催化特性不同[21]。 就转化机制而言,黑曲霉酶系表现出明确底物选择性,优先转化野黄芩苷为野黄芩素,随后才作用于黄芩苷转化为黄芩素,这种顺序性的差异,可能与底物分子结构和酶活性中心亲和力不同有关[21]。 现代分子生物学技术为黄芩苷的生物合成提供新思路。 研究发现,黄芩黄酮类化合物合成分为地上和地下2 条代谢通路,FNSII-1 基因调控地上部分野黄芩素的合成,FNSII-2 和CHS-2 基因则负责地下根部黄芩苷等根特异性黄酮的合成。 为证实关键酶基因在黄芩活性成分生物合成中核心作用,研究者通过构建 pYES-dest52-FNSII-1 和 pYES-dest52-CHS-2 真核表达载体并在酿酒酵母INVSc1 中成功表达,为代谢工程菌株理论奠定基础[22]。 转化产物也表现出良好生物功能,黄芩素通过TLR4/NF-κB 信号通路在HCT-116 和CT26 细胞中显著抑制迁移并促进线粒体介导凋亡显示其抗癌潜力[23]。 此外,转化产物黄芩素在动物体内可进一步代谢为黄芩苷和其他次级代谢物形成复杂的代谢网络[22]。 这些发现不仅阐明了黄芩苷微生物转化的分子机制,也为开发高生物利用度的黄芩类创新药物提供了科学依据。
4.2.2 淫羊藿苷的微生物转化
淫羊藿苷是淫羊藿的主要活性成分,口服生物利用度同样偏低。 该物质经口服后主要通过肠道微生物的酶促反应转化为活性更强的次级代谢物,宝藿苷Ⅰ是最主要的转化产物,而这种物质在原始药材中含量极低[24]。 微生物转化淫羊藿苷遵循精确的阶段性水解规律。 β-葡萄糖苷酶特异性水解C-7 位葡萄糖基生成宝藿苷Ⅰ;随后α-鼠李糖苷酶催化切除C-3 位鼠李糖基,最终生成淫羊藿素[25]。 对于更复杂的多糖苷如朝藿定C,其转化需要多种酶的协同作用:由特异性α-1,2-鼠李糖苷酶BtRha 切除C-3 位外侧鼠李糖生成淫羊藿苷,再按上述途径继续转化[25]。 酶工程技术的创新极大地推动了工业化发展。 有研究已成功构建了一种新型固定化耐热β-葡萄糖苷酶,其催化效率较游离酶提升61%。 在最优条件下,该酶能高效地将2 000 mg/L 淫羊藿素转化为宝藿苷Ⅰ,转化率高达97.6%,重复使用10 次后依旧能保留85.2%的活性。 此研究为首例利用固定化耐热β-葡萄糖苷酶高效生产宝藿苷Ⅰ的报道,为该化合物的绿色制造提供了关键技术[26]。 此外,不同微生物来源水解酶底物选择性存在显著差异,例如短刺小克银汉霉菌能特异性水解C-7 位葡萄糖基,而绿色木霉来源β-葡萄糖苷酶则显示出更高催化活力和稳定性[27]。目前,酶工程技术已经在提高转化效率方面取得重大突破。 有研究人员将来源于硫叶菌(Sulfolobus solfataricus)的LacS 基因与来源于拟杆菌(Bacteroides thetaiotaomicron)的BtRha 构建共表达系统可实现功能完美互补。 该复合酶系仅需15 min 即可将淫羊藿苷转化为宝藿苷Ⅰ,3 h 内便能进一步转化为淫羊藿素,总转化率接近100%[24]。 固定化酶技术的发展进一步推动该转化过程走向工业化应用。 以SiO2 为载体的固定化β-葡萄糖苷酶在重复使用6 次后,对淫羊藿苷转化率仍保持在94% 以上[28]。 植物乳植杆菌(Lactiplantibacillus plantarum)发酵淫羊藿61 h后,朝藿定A、B、C 等多糖苷相对含量显著下降,宝藿苷Ⅱ等低糖苷和去水淫羊藿素等苷元含量明显上升,呈现出清晰的“多糖苷→低糖苷→苷元” 转化规律[29],发酵产物对DPPH 自由基和羟自由基清除率随之明显提高。 宝藿苷Ⅰ通过激活p38 信号通路并抑制STAT3 通路来实现子宫内膜癌Ishikawa 细胞诱导凋亡作用[30]。 淫羊藿苷Ⅱ表现出抗胶质瘤活性,其作用机制涉及抑制胶质瘤细胞中NF-κB 信号通路的激活[31]。 此外,宝藿苷Ⅰ肠道渗透性比淫羊藿苷更佳,更容易被吸收入血发挥全身药理作用[29],这为其成为更具开发价值的药物先导物提供了理论依据。
4.2.3 槲皮素及其糖苷的微生物转化
槲皮素在自然界中广泛以芦丁、异槲皮苷形式存在,其口服生物利用度受糖基结构限制。 肠道微生物群通过阶段性水解策略实现其高效转化:由α-鼠李糖苷酶切除芦丁中鼠李糖基生成异槲皮苷,再由β-葡萄糖苷酶水解脱去葡萄糖基,最终释放槲皮素[32]。研究表明,乳酸菌如戊糖乳杆菌NGI01 通过分泌β-葡萄糖苷酶实现此转化,转化率可达18.8%[33]。 槲皮素与肠道微生物群存在双向相互作用。 一方面,微生物酶系转化槲皮素糖苷;另一方面,槲皮素及其代谢产物对肠道菌群结构具有卓越调节能力。 研究显示,槲皮素能调节肠道菌群结构,如降低厚壁菌门/拟杆菌门的比例,抑制条件致病菌并促进益生菌增殖[34]。 这种调节作用与槲皮素抗糖尿病效应密切相关,在db/db 小鼠模型中,槲皮素通过此机制改善了胰岛素抵抗和肠道屏障功能[35]。 黑曲霉在该转化过程中表现出优秀催化能力,其对芦丁转化率高达96.44%[36]。转化后槲皮素苷元可被肠道微生物进一步代谢,通过C 环裂解生成原儿茶酸和3,4-二羟基苯乙酸等多种小分子酚酸[37]。 这些代谢变化显著提升生物活性:槲皮素通过内外源诱导细胞周期自噬阻滞发挥抗癌作用[38];通过激活Nrf2/HO-1 信号通路增强细胞抗氧化防御能力[39];同时通过抑制MCP-1/CCR2 通路和修复肠道屏障发挥抗炎和抗糖尿病作用[35],这为开发高生物利用度的黄酮醇制剂提供了新思路。
4.3 二氢黄酮类化合物的转化(以甘草苷为例)
如图6 所示,以甘草苷为代表的二氢黄酮类化合物的微生物转化的核心机制在于特异性糖苷键的水解及独特的植物-微生物共生互作。 甘草苷的生物利用度受限于糖苷结构,在体内需经微生物酶解转化为苷元甘草素才能充分发挥活性[40]。 研究表明,这一转化过程主要由肠道微生物及甘草内生真菌分泌的β-葡萄糖苷酶和β-葡萄糖醛酸苷酶介导,通过特异性水解C-糖苷键实现活化[41]。 其甘草内生真菌在其转化过程中表现出重要作用。 研究发现,甘草内生真菌菌株Z6 和Z15 不仅具有甘草酸诱导的β-葡萄糖醛酸酶活性,其定殖还可通过反馈调节机制,上调宿主甘草中糖酵解及甘草酸合成通路关键基因从而协同促进甘草酸本身的生物合成与积累,该促进作用与调控宿主糖代谢及甘草酸合成通路基因的表达有关[42]。 与此同时,不同微生物来源的水解酶表现出分明的催化特性差异。 研究发现,来源于甘草内生真菌Z6GH2 和Z15GH2 蛋白能够以不同方式高效水解甘草酸[42]。 同时,来自甘草根际土壤的紫孢青霉(Penicillium purpurogenum) Li-3、土曲霉(Aspergillus terreus) Li-20 和焦曲霉(Aspergillus ustus)Li-62 也展现出对甘草酸不同转化模式,分别主要产生甘草酸3-O-单β-D-葡萄糖醛酸(glycyrrhetic acid 3-O-monoβ-D-glucuronide,GAMG)、甘草酸(glycyrrhizic acid,GA)和GAMG-GA 混合物[43-44]。 相关性分析进一步确定了特定内生菌与甘草酸含量间为正相关,如青霉属(Penicillium)和阿德利长西氏酵母(Naganishia)与类黄酮和甘草酸含量显著正相关。 从生态角度分析,野生甘草与栽培甘草的内生菌群落组成存在清晰差异。 宏基因组分析显示,野生甘草中内生菌功能主要富集于生物合成、磷酸盐代谢、激素合成以及多种次生代谢物生物合成途径,这与野生甘草中活性成分含量较高密切相关[43]。 合成微生物群落(SCB8)的应用展现出比单一菌株更优的效果。 SCB8 通过调节甘草中淀粉和蔗糖代谢、植物激素信号通路以及次生代谢物生物合成相关基因表达积累黄酮类和萜类化合物[44]。 SCB8 代谢物处理可产生与活菌定殖相似效应,其特有的49 种代谢物被认为是调控宿主代谢的关键信号分子[44]。 转化产物甘草素不仅表现出优于原形的抗氧化、抗炎和抗癌活性,其肠道吸收特性也得到良好改善[40]。 更重要的是,甘草酸及其衍生物可作为药物递送载体,通过形成胶束、包合物等系统,有效提高难溶性药物的生物利用度和靶向性,为甘草资源的深度开发提供了新方向[41]。
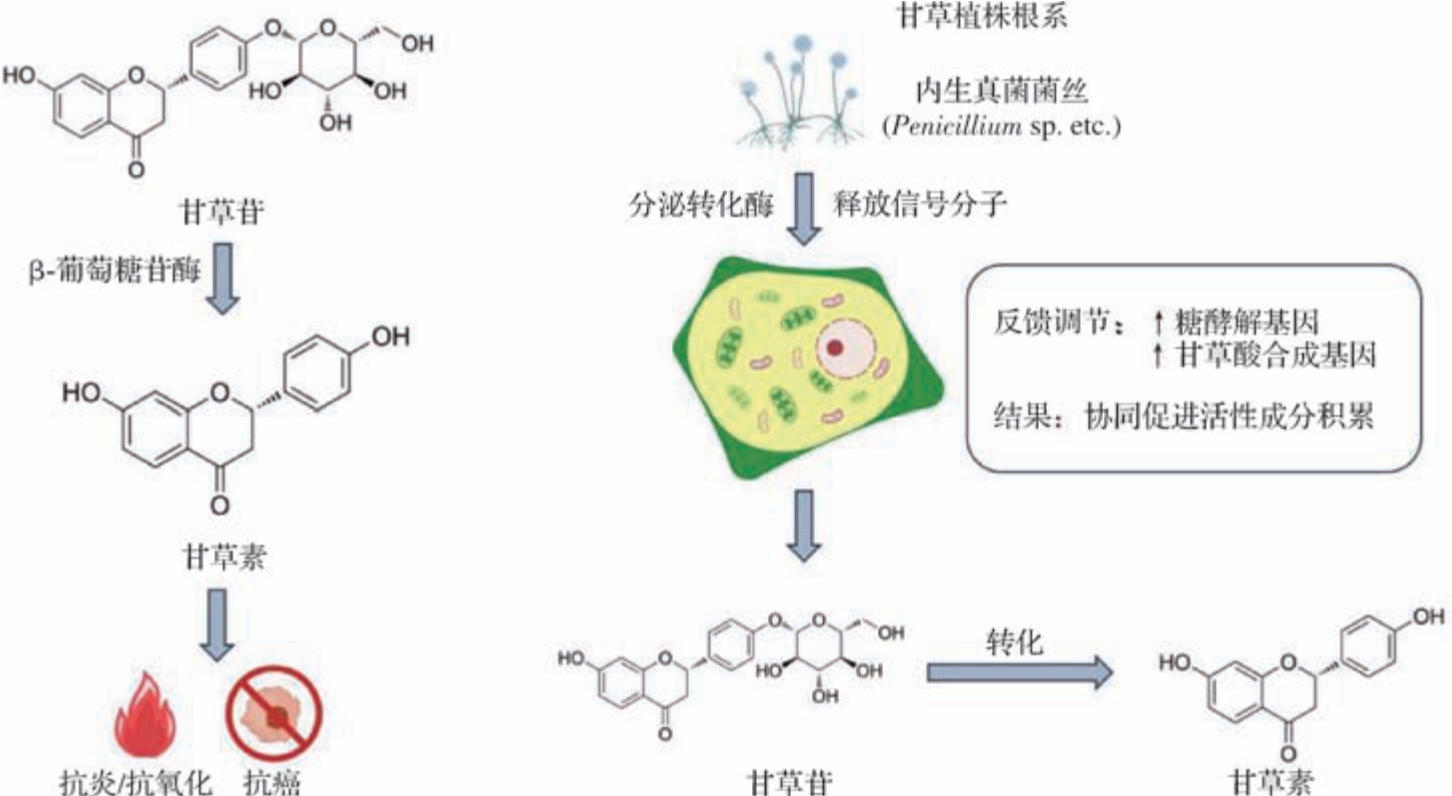
图6 二氢黄酮类化合物(以甘草苷为例)微生物转化的核心路径
Fig.6 Core pathway of microbial transformation for dihydroflavonoids (exemplified by liquiritin)
注:↑表示上升。
5 非黄酮类多酚的微生物转化
5.1 转化的共性特征
非黄酮类多酚虽不具有典型黄酮骨架,但其同样面临口服生物利用度低的共性挑战。 微生物转化是提升其效价的重要手段,其核心途径同样围绕结构修饰展开,主要包括两类策略:一是通过β-葡萄糖苷酶水解酶去除糖基,释放活性苷元;二是利用微生物强大的异源生物合成能力,从廉价碳源从头生产白藜芦醇,或对其骨架进行羟基化、甲基化等衍生化,直接创造具有增强活性的新化合物(表1)。 这些过程凸显了微生物转化在突破天然产物应用瓶颈方面的通用性与创造性,白藜芦醇的微生物转化集中体现了这些策略(图7)。
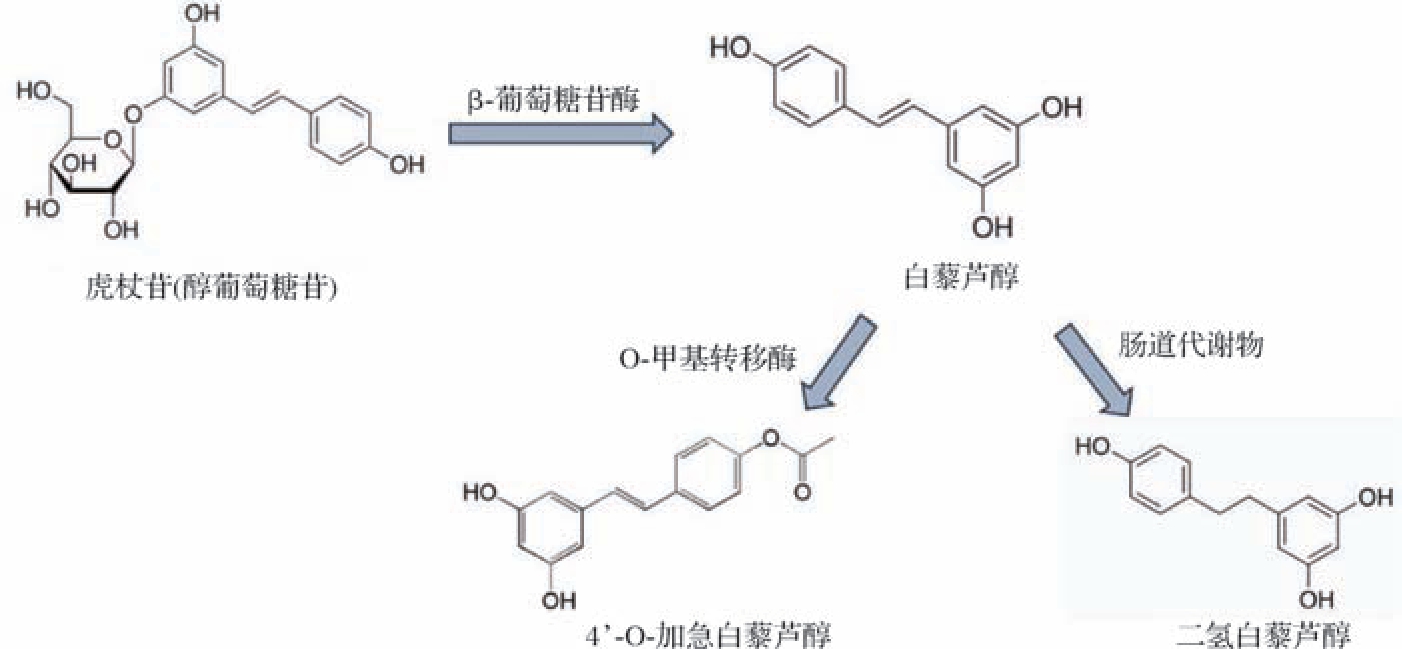
图7 非黄酮类多酚(以白藜芦醇为例)微生物转化的核心路径
Fig.7 Core pathway of microbial transformation for non-flavonoid polyphenols (exemplified by resveratrol)
5.2 代表性转化途径与分子机制:以白藜芦醇为例
白藜芦醇是多酚类化合物中研究微生物转化的经典范例,其相关研究涵盖了从简单水解到复杂全合成的完整技术链条。
5.2.1 转化途径与活性提升
白藜芦醇在天然植物中主要以虎杖苷等糖苷形式存在,生物利用度严重受限。 微生物转化通过多种机制有效突破这一瓶颈:其一,微生物来源β-葡萄糖苷酶能高效水解糖苷键,释放活性苷元;其二,微生物通过异源生物合成途径,直接以葡萄糖等廉价碳源为原料生产白藜芦醇及其高价值衍生物。 工程化大肠杆菌通过表达链霉菌来源O-甲基转移酶和S-腺苷甲硫氨酸合成酶,成功合成4′-O-甲基白藜芦醇,产量高达115.485 mg/L,且该衍生物对肺癌和肝癌细胞系细胞毒性显著优于白藜芦醇本身[45]。 贝氏立枯丝菌则能将其转化为具有GPR119 激动活性新型甲基葡萄糖苷衍生物,在1 μmol/L 浓度下可显著促进胰岛素分泌,为抗糖尿病药物研发提供了新先导化合物[46]。 此外,肠道微生物群通过还原、脱羟基化等反应,将白藜芦醇代谢为二氢白藜芦醇、月桂叶素和4-羟基二苄基等代谢物,这些代谢物在调节血压、减少动脉粥样硬化斑块等心血管保护和代谢调控中发挥关键作用[47-48]。研究表明,补充白藜芦醇同样可以突出改变肠道菌群组成,增加阿克曼菌、毛螺菌科等有益菌丰度,这可能是其发挥系统性健康益处核心机制之一[47]。
5.2.2 关键酶系与合成生物学应用
对关键酶系、代谢途径和合成系统的精细调控,可以有效提升白藜芦醇微生物制造效率。 其核心酶系主要包括两类:一是负责水解糖苷键β-葡萄糖苷酶;二是负责从头合成酪氨酸氨裂解酶(tyrosine ammonia lyase,TAL)、4-香豆酰辅酶A 连接酶(4-coumarate:coenzyme a ligase,4CL)和芪合酶(stilbene synthase,STS),其中TAL 催化酪氨酸转化为对香豆酸是途径的限速步骤[49]。 此外,前体丙二酰辅酶A 供应水平直接影响白藜芦醇最终产量,优化过表达乙酰辅酶A 羧化酶(acetyl-CoA carboxylase,ACC)或抑制竞争途径可进行调节。 现已合成生物学技术是通过CRISPRi 系统精细调节中心代谢,靶向抑制fabB(脂肪酸合成)、fumC[三羧酸循环(tricarboxylic acid cycle,TCA 循环)]等竞争途径基因,可使工程大肠杆菌丙二酰辅酶A 水平提升142%,白藜芦醇产量提高至199.56 mg/L[50]。 模块化共培养策略通过将合成途径分置于专门上游(对香豆酸生产)和下游(白藜芦醇合成)菌株,有效减轻代谢负担;结合构建白藜芦醇依赖性电路及利用葡萄糖-阿拉伯糖混合碳源,使共培养系统产量达204.80 mg/L,较单培养提升12.8倍[50]。 同时,对TAL、4CL 和STS 的理性设计与定向进化蛋白质工程结合ECNet 机器学习模型预测,有效突破了酶活性瓶颈[49];而开发白藜芦醇响应生物传感器则实现了高产菌株的高通量筛选,大幅加速了工程菌株的构建进程。
6 总结与展望
6.1 总结
本文系统梳理了微生物转化提升黄酮类及部分非黄酮类多酚化合物生物利用度与生物活性分子机制与研究进展。 文章采用共性归纳与案例深析相结合框架,首先梳理了异黄酮、黄烷醇、花色素等各大类化合物微生物转化共同规律与核心酶系,继而选取每类中研究最为深入代表性物质,对其特异性转化途径、关键酶的理性设计及合成生物学应用进行了深度剖析。 系统比较了不同化合物的转化特性(表1),揭示其增效核心普遍在于微生物酶系对糖苷键、酚环等关键位点精准修饰。 研究表明,微生物转化不仅是将前体活化为易吸收形式的有效手段,更是衍生具有增强或全新药理活性结构的创新平台,实现了从提高生物利用度到创造高值功能分子的跨越。
6.2 展望
黄酮类化合物的微生物转化正经历着从认识自然到设计创造的范式转变。 依托CRISPRi/Cas 9 动态调控回路及人工微生物共培养体系,对微生物进行超进化设计,能够智能平衡细胞生长与产物合成,实现黄酮类化合物及其衍生物的高效、可持续生产。 利用宏基因组/宏转录组学深度挖掘未培养微生物中的新型酶资源,借助机器学习模型能精准预测关键酶突变体的功能,将极大提升蛋白质工程的效率。 深入探究黄酮类化合物及其微生物代谢物如何通过肠-脑轴、肠-肝轴等途径调控宿主生理,并解析其与肠道菌群的双向调控机制,将为开发基于黄酮的精准营养干预策略提供全新视角。 通过深度整合机制挖掘-途径重构-功能验证的研究链条,微生物转化技术有望引领黄酮类化合物研究进入一个功能导向、精准设计、增效显著的崭新阶段。
未来,应推动微生物转化技术与功能食品、创新药物、绿色化工等领域的深度融合,在食品领域开发高生物利用度的黄酮类营养强化剂与发酵食品;在医药领域以微生物转化衍生物为先导化合物,研发靶向抗癌、抗炎、降糖的创新药物;在化工领域则可以利用微生物转化的环境友好特性,实现黄酮类高值产物的绿色合成。 深度整合利用微生物转化技术将彻底打破黄酮类化合物的应用瓶颈,引领该领域进入精准设计、功能升级、跨界融合的崭新发展阶段。
[1] Hasnat H, Shompa S A, Islam M M, et al. Flavonoids:A treasure house of prospective pharmacological potentials[J]. Heliyon,2024,10(6):e27533.
[2] 吴雪娇, 赵力超, 方祥, 等. 大豆活性组分和肠道菌群相互作用研究进展[J]. 食品科学, 2021, 42(13):265 -272.Wu X J, Zhao L C, Fang X, et al. Progress in understanding the interaction between bioactive components of soybean and gut microbiota[J]. Food Science, 2021, 42(13):265 -272.
[3] de Queirós L D, Dias F F G, de Ávila A R A, et al. Effects of enzyme-assisted extraction on the profile and bioaccessibility of isoflavones from soybean flour[J]. Food Research International, 2021,147:110474.
[4] 赵晓佳, 李易聪, 王秀伶. 大豆异黄酮微生物转化研究进展[J]. 微生物学报, 2020, 60(2):211 -226.Zhao X J, Li Y C, Wang X L. Progress in microbial conversion of soy isoflavones[J]. Acta Microbiologica Sinica,2020,60(2):211-226.
[5] Chen L R, Ko N Y, Chen K H. Isoflavone supplements for menopausal women:A systematic review[J]. Nutrients, 2019, 11(11):2649.
[6] 张洁, 张朋朋, 谭宏强, 等. 羟基化大豆苷元衍生物的制备方法与生物活性研究进展[J]. 中国药物化学杂志, 2022(8):640 -651.Zhang J, Zhang P P, Tan H Q, et al. Advances in the preparation and biological activities of hydroxylized derivatives of daidzein[J].Chinese Journal of Medicinal Chemistry, 2022(8):640 -651.
[7] Qin W C, Zhang L J, Yang Y C, et al. Rational design of shortchain dehydrogenase DHDR for efficient synthesis of (S)-equol[J].Enzyme and Microbial Technology, 2024, 180:110480.
[8] Deng H N, Gao S, Zhang W P, et al. High titer of (S)-equol synthesis from daidzein in Escherichia coli[J]. ACS Synthetic Biology,2022, 11(12)4043 -4053
[9] Liu T, Wang J, Du M R, et al. The interplays between epigallocatechin-3-gallate (EGCG) and Aspergillus niger RAF106 based on metabolism[J]. Fungal Biology, 2022, 126(11 -12):727 -737.
[10] 张宁. 茯砖茶的代谢组分析及其中的细菌对类黄酮的结构修饰[D]. 合肥:安徽农业大学, 2024.Zhang N. Metabolome analysis of Fuzhuan brick tea and the structural modification against flavonoids by its bacteria[D]. Hefei:Anhui Agriculture University, 2024.
[11] Liu T, Zhou G, Du M R, et al. The interplay between ( -)-epigallocatechin-3-gallate (EGCG) and Aspergillus niger RAF106, an EGCG-biotransforming fungus derived from Pu-erh tea[J]. LWT,2023, 180:114678.
[12] Ordaz-Pérez D, Fuentes-Garibay J A, Guerrero-Olazarán M, et al.Sequence engineering of an Aspergillus niger tannase to produce in Pichia pastoris a single-chain enzyme with high specific activity[J]. Molecular Biotechnology, 2022, 64(4):388 -400.
[13] Johan U U M, Rahman R N Z R A, Ahmad Kamarudin N H, et al. An integrated overview of bacterial carboxylesterase:Structure,function and biocatalytic applications[J]. Colloids and Surfaces B:Biointerfaces, 2021, 205:111882.
[14] Nakano H, Sakao K, Wada K, et al. Ameliorative effects of anthocyanin metabolites on western diet-induced NAFLD by modulating co-occurrence networks of gut microbiome[J]. Microorganisms,2023, 11(10):2408.
[15] Zhu L F, Cao F L, Hu Z M, et al. Cyanidin-3-O-glucoside alleviates alcoholic liver injury via modulating gut microbiota and metabolites in mice[J]. Nutrients, 2024, 16(5):694.
[16] Liang A Q, Leonard W, Beasley J T, et al. Anthocyanins-gut microbiota-health axis:A review[J]. Critical Reviews in Food Science and Nutrition, 2024, 64(21):7563 -7588.
[17] Laudani S, Godos J, di Domenico F M, et al. Anthocyanin effects on vascular and endothelial health:Evidence from clinical trials and role of gut microbiota metabolites[J]. Antioxidants, 2023, 12(9):1773.
[18] Hu R Z, He Z Y, Liu M, et al. Dietary protocatechuic acid ameliorates inflammation and up-regulates intestinal tight junction proteins by modulating gut microbiota in LPS-challenged piglets[J].Journal of Animal Science and Biotechnology, 2020, 11(1):92.
[19] Vannuchi N, Jamar G, de Rosso V V, et al. Dose-dependent effects of anthocyanin-rich extracts on obesity-induced inflammation and gut microbiota modulation[J]. BioFactors,2025,51:e2144.
[20] Ntemiri A, Ghosh T S, Gheller M E, et al. Whole blueberry and isolated polyphenol-rich fractions modulate specific gut microbes in an in vitro colon model and in a pilot study in human consumers[J]. Nutrients, 2020, 12(9):2800.
[21] Zhu S M, Chen Q Y, Al E. Characterization of three flavonol synthases involved in the biosynthesis of 4′-deoxyflavonol in Scutellaria baicalensis Georgi[J]. Medicinal Plant Biology, 2025, 4(1):430.
[22] Pei T L, Yan M X, Huang Y B, et al. Specific flavonoids and their biosynthetic pathway in Scutellaria baicalensis[J]. Frontiers in Plant Science, 2022, 13:866282.
[23] Song L J, Zhu S M, Liu C, et al. Baicalin triggers apoptosis, inhibits migration, and enhances anti-tumor immunity in colorectal cancer via TLR4/NF-κB signaling pathway[J]. Journal of Food Biochemistry, 2022, 46(3):e13703.
[24] Gu Y, Hu Z F, Zheng D W, et al. Baohuoside I suppresses the NLRP3 inflammasome activation via targeting GPER to fight against Parkinson’s disease[J]. Phytomedicine, 2024, 126:155435.
[25] Dong Y R, Zhang S S, Lu C N, et al. Immobilization of thermostable β-glucosidase and α-L-rhamnosidase from Dictyoglomus thermophilum DSM3960 and their cooperated biotransformation of total flavonoids extract from Epimedium into icaritin[J]. Catalysis Letters, 2021, 151(10):2950 -2963.
[26] Lu S, Zou K, Guo B Y, et al. One-step purification and immobilization of thermostable β-glucosidase on Na-Y zeolite based on the linker and its application in the efficient production of baohuoside I from icariin[J]. Bioorganic Chemistry, 2022, 121:105690.
[27] 张宇航, 陈旺, 冯自立, 等. 淫羊藿黄酮苷类化合物生物转化的研究进展[J]. 中国药房, 2022, 33(12):1525 -1529.Zhang Y H, Chen W, Feng Z L, et al. Research progress on the biotransformation of flavonoid glycosides in Epimedii Folium[J].China Pharmacy, 2022, 33(12):1525 -1529.
[28] 陈芳, 南延明, 宋伟, 等. 巫山淫羊藿资源、人工种植及活性成分转化应用研究进展[J]. 亚太传统医药,2024,20(5):248 -255.Chen F, Nan Y M, Song W, et al. Research progress on the resources, artificial cultivation and the application of active ingredient transformation of Epimedium wushanense[J]. Asia-Pacific Traditional Medicine, 2024, 20(5):248 -255.
[29] 谢炎福, 押辉远, 张新雨, 等. 植物乳杆菌对淫羊藿黄酮苷类成分的转化作用[J]. 中国酿造, 2022, 41(12):103 -109.Xie Y F, Ya H Y, Zhang X Y, et al. Biotransformation of flavonoid glycosides in Epimedium by Lactobacillus plantarum[J].China Brewing, 2022, 41(12):103 -109.
[30] 康丽荣, 张林爱, 张婧, 等. 宝藿苷Ⅰ诱导子宫内膜癌线粒体依赖性凋亡的机制研究[J]. 中华内分泌外科杂志(中英文),2022, 16(3):330 -334.Kang L R, Zhang L A, Zhang J, et al. Effect of astragalin on apoptosis of human colon cancer ISHIKAWA cells[J]. Chinese Journal of Endocrine Surgery, 2022, 16(3):330 -334.
[31] Li J S, Yao R X, Lyu Q, et al. Biotransformation and activity identification of icariin in human intestinal fungus Pichia occidentalis[J]. Journal of Asian Natural Products Research,2026,28(2):238 -249.
[32] Zhang F, Pan L X, Nie H M, et al. Co-expression of α-L-rhamnosidase and β-glucosidase in Aspergillus niger and its application in enzymatic production of quercetin[J]. Food Chemistry, 2025,469:142274.
[33] Park C M, Kim G M, Cha G S. Biotransformation of flavonoids by newly isolated and characterized Lactobacillus pentosus NGI01 strain from kimchi[J]. Microorganisms, 2021, 9(5):1075.
[34] Pan L X, Ye H Y, Pi X E, et al. Effects of several flavonoids on human gut microbiota and its metabolism by in vitro simulated fermentation[J]. Frontiers in Microbiology, 2023, 14:1092729.
[35] Yuan M, Sun T Q, Zhang Y X, et al. Quercetin alleviates insulin resistance and repairs intestinal barrier in db/db mice by modulating gut microbiota[J]. Nutrients, 2024, 16(12):1870.
[36] Li L J, Liu X Q, Du X P, et al. Preparation of isoquercitrin by biotransformation of rutin using α-L-rhamnosidase from Aspergillus niger JMU-TS528 and HSCCC purification[J]. Preparative Biochemistry & Biotechnology, 2020, 50(1):1 -9.
[37] Ji L, Shi W J, Li Y L, et al. Systematic identification, fragmentation pattern, and metabolic pathways of hyperoside in rat plasma,urine, and feces by UPLC-Q-exactive orbitrap MS[J]. Journal of Analytical Methods in Chemistry, 2022, 2022:2623018.
[38] Wang Z X, Ma J, Li X Y, et al. Quercetin induces p53-independent cancer cell death through lysosome activation by the transcription factor EB and Reactive Oxygen Species-dependent ferroptosis[J].British Journal of Pharmacology, 2021, 178(5):1133 -1148.
[39] 余良昆, 李勇, 钟发明, 等. 槲皮素调控Nrf2/HO-1 信号通路抗氧化应激的机制研究[J]. 江西中医药大学学报, 2023, 35(6):78 -82; 88.Yu L K, Li Y, Zhong F M, et al. Quercetin regulates Nrf2/HO-1 signaling pathway against oxidative stress[J]. Journal of Jiangxi University of Traditional Chinese Medicine, 2023, 35(6):78 -82; 88.
[40] Mittal A, Nagpal M, Vashistha V K. Recent advances in the pharmacological activities of glycyrrhizin, glycyrrhetinic acid, and their analogs[J]. Revista Brasileira de Farmacognosia, 2023, 33(6):1154 -1169.
[41] Zhao Z W, Cai M H, Wang P, et al. Application of glycyrrhizic acid and glycyrrhetinic acid in the drug delivery system[J]. Journal of Drug Delivery Science and Technology, 2024, 97:105754.
[42] Zuo X, Xu Y, Ren G X, et al. Licorice endophytes activate glycyrrhizin synthesis metabolic flux through feedback of β-glucuronidase conversion activity[J]. International Journal of Biological Macromolecules, 2025, 302:140484.
[43] Zhang Q, Gao B L, Xiao Y W, et al. Purification and characterization of a novel β-glucuronidase precisely converts glycyrrhizin to glycyrrhetinic acid 3-O-mono-β-D-glucuronide from plant endophytic Chaetomium globosum DX-THS3[J]. International Journal of Biological Macromolecules, 2020, 159:782 -792.
[44] Li T, Ren G X, Zhou N, et al. A new simplified synthetic endophyte community regulates the synthesis of active ingredients in Glycyrrhiza uralensis Fisch[J]. Industrial Crops and Products,2025, 227:120781.
[45] Huy N Q, Linh Q M, Hoa N T A, et al. Enhanced production of methylated resveratrol in engineered Escherichia coli and its anticancer activity[J]. 3 Biotech, 2025, 15(8):276.
[46] Peng Y, Huan Y, Chen J J, et al. Microbial biotransformation to obtain stilbene methylglucoside with GPR119 agonistic activity[J].Frontiers in Microbiology, 2023, 14:1148513.
[47] Godos J, Romano G L, Gozzo L, et al. Resveratrol and vascular health:Evidence from clinical studies and mechanisms of actions related to its metabolites produced by gut microbiota[J]. Frontiers in Pharmacology, 2024, 15:1368949.
[48] Iglesias-Aguirre C E,Vallejo F,Beltrán D,et al. 4-Hydroxydibenzyl:A novel metabolite from the human gut microbiota after consuming resveratrol[J]. Food & Function, 2022, 13(14):7487 -7493.
[49] Feng C, Chen J, Ye W X, et al. Synthetic biology-driven microbial production of resveratrol:advances and perspectives[J]. Frontiers in Bioengineering and Biotechnology, 2022, 10:833920.
[50] Li J, Qiu Z T, Zhao G R. Modular engineering of E. Coli coculture for efficient production of resveratrol from glucose and Arabinose mixture[J]. Synthetic and Systems Biotechnology, 2022, 7(2):718 -729.