L-高丝氨酸(L-homoserine)是L-苏氨酸、L-异亮氨酸和L-甲硫氨酸的前体,在医药与农业领域中发挥着重要作用。 L-高丝氨酸可以有效抑制细胞镰状化[1],在鸡饲料中添加L-高丝氨酸可以有效增加鸡苗生长[2]。 另外,以L-高丝氨酸为底物合成L-草铵膦的路线相较于L-甲硫氨酸、L-丙氨酸和L-谷氨酸等底物更加简单高效,可以降低L-草铵膦制备时产生的污染[3],符合绿色发展需求。
L-高丝氨酸的生产方法目前主要有化学合成法和微生物发酵法[4-5],相比于化学合成,利用微生物发酵法生产L-高丝氨酸可以使用廉价原料,降低对环境的污染,是目前主流的研究方向。 构建高效合成L-高丝氨酸的工程菌是实现该目标的前提条件,目前主要集中于磷酸烯醇式丙酮酸-草酰乙酸-天冬氨酸节点的改造以及双功能天冬氨酸激酶/高丝氨酸脱氢酶和天冬氨酸半醛脱氢酶的辅因子优化[6-9]。 如过表达来自谷氨酸棒杆菌的aspB(aspC 同工酶),可使L-高丝氨酸产量提高14%[10],在此基础上引入谷氨酸棒杆菌的gltAB,在氮限制的情况下也能稳定形成谷氨酸,使L-高丝氨酸的产量提高10%,进一步过表达aspA 基因,使三羧酸(tricarboxylic acid,TCA)循环中的碳流入天冬氨酸,L-高丝氨酸的产量提高了6%。 除此以外,柠檬酸合酶编码基因gltA 转录活性的下调会对L-高丝氨酸的合成产生影响,草酰乙酸(oxaloacetic acid,OAA)可以与乙酰辅酶A 在gltA 催化下缩合进入TCA 循环[11],而TCA 循环中的碳损耗较大。 为了平衡L-高丝氨酸合成和细胞生长的碳流动,Chen 等[10]对gltA 采取5′UTR 工程化改造以其降低转录活性。 当其转录活性降低为原始的56% 时,L-高丝氨酸的产量提高了38%。 有研究者选择过表达吡啶核苷酸转氢酶编码基因pntAB 来强化还原型烟酰胺腺嘌呤二核苷酸磷酸(nicotinamide adenine dinucleotide phosphate,NADPH)的供应[12]或者引入异源脱氢酶解除单一辅因子依赖的限制[13],在引入来自铜绿假单胞菌(Pseudomonas aeruginosa)的天冬氨酸脱氢酶和来自运动替斯崔纳菌(Tistrella mobilis)的天冬氨酸半醛脱氢酶[14]后,菌体内NADH/NAD+ 的比例明显下降,在此基础上过表达pntAB,在5 L 发酵罐中L-高丝氨酸产量达到85.29 g/L,说明辅因子协同利用对L-高丝氨酸的合成有良好效果。
如图1-a 所示,本研究通过对野生型大肠杆菌(Escherichia coli)W3110 进行系统代谢工程改造,通过阻断副产物途径、强化合成途径、加强外排系统并优化关键基因拷贝数等一系列策略,构建了1 株无质粒的高产L-高丝氨酸的工程菌株,在5 L 发酵罐中经过补料分批发酵获得了105.44 g/L 的L-高丝氨酸。
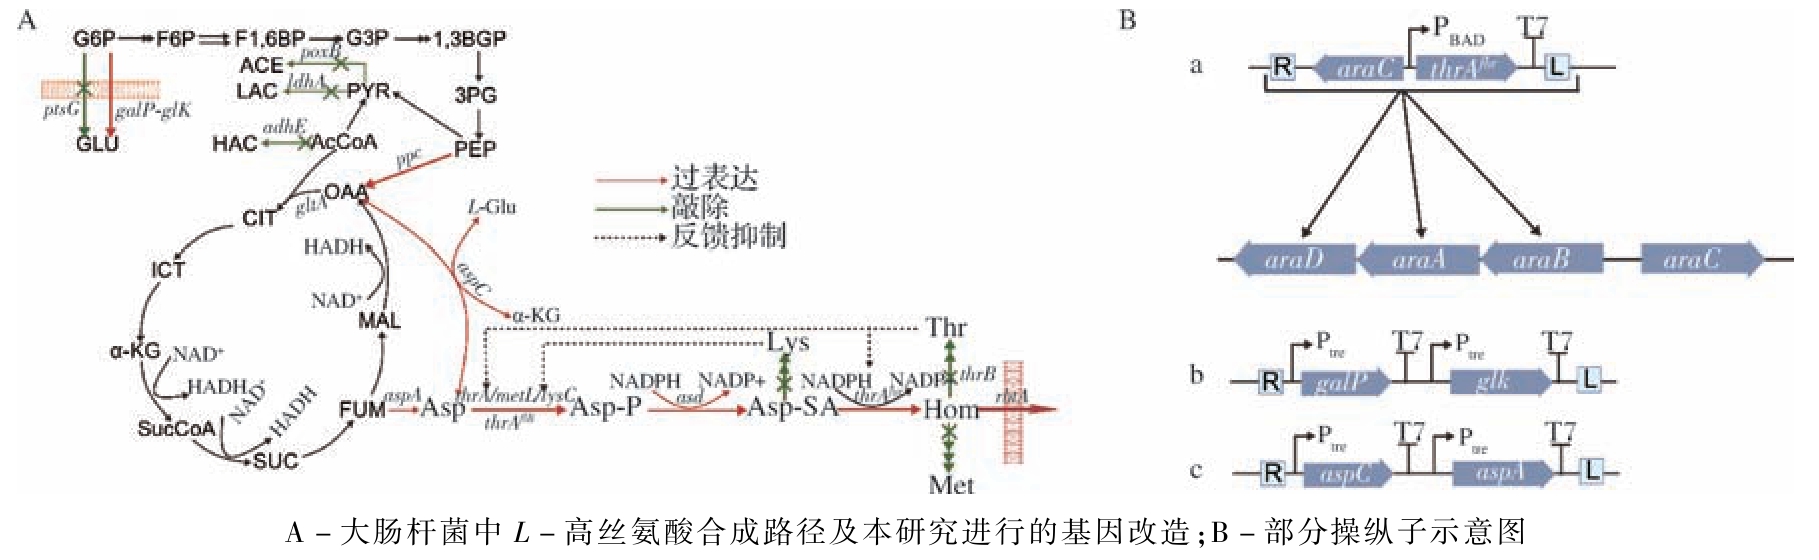
图1 本研究主要技术路线
Fig.1 Main technical roadmap of this study
注:G6P:葡萄糖-6-磷酸(glucose-6-phosphate);F6P:果糖-6-磷酸(fructose-6-phosphate);F1,6BP:果糖-1,6-二磷酸(fructose-1,6-bisphosphate);G3P:3-磷酸-甘油醛(glyceraldehyde-3-phosphate);1,3BGP:1,3-二磷酸甘油酸(1,3-bisphosphoglycerate);3PG:3-磷酸甘油酸(3-phosphoglycerate);PEP:磷酸烯醇式丙酮酸(phosphoenolpyruvate);PYR:丙酮酸(pyruvate);ACE:乙酸(acetate);LAC:乳酸(lactate);HAC:乙醛(acetaldehyde);OAA:草酰乙酸(oxaloacetate);AcCoA:乙酰辅酶A(acetyl-CoA);CIT:柠檬酸(citrate);ICT:异柠檬酸(isocitrate);α-KG:α-酮戊二酸(α-ketoglutarate);SucCoA:琥珀酰辅酶A(succinyl-CoA);SUC:琥珀酸(succinate);FUM:富马酸(fumarate);MAL:苹果酸(malate);Asp:L-天冬氨酸;Asp-P:4-磷酸-天冬氨酸(4-phospho-Asp);Asp-SA:L-天冬氨酸-4-半醛(Asp-4-semialdehyde);Lys:L-赖氨酸;Met:L-甲硫氨酸;Hom:L-高丝氨酸(L-homoserine);Thr:L-苏氨酸。
1 材料与方法
1.1 菌株与质粒
本研究使用大肠杆菌DH5α 作为克隆宿主,使用大肠杆菌W3110 作为工程菌株,使用CRISPR 转座酶进行基因编辑,所用质粒为pTnsABC、pDonor、pQcascade以及pCutamp。 本文涉及的质粒和菌株如表1 所示。
表1 本研究所使用的质粒和菌株
Table 1 Strains and plasmids used in this study
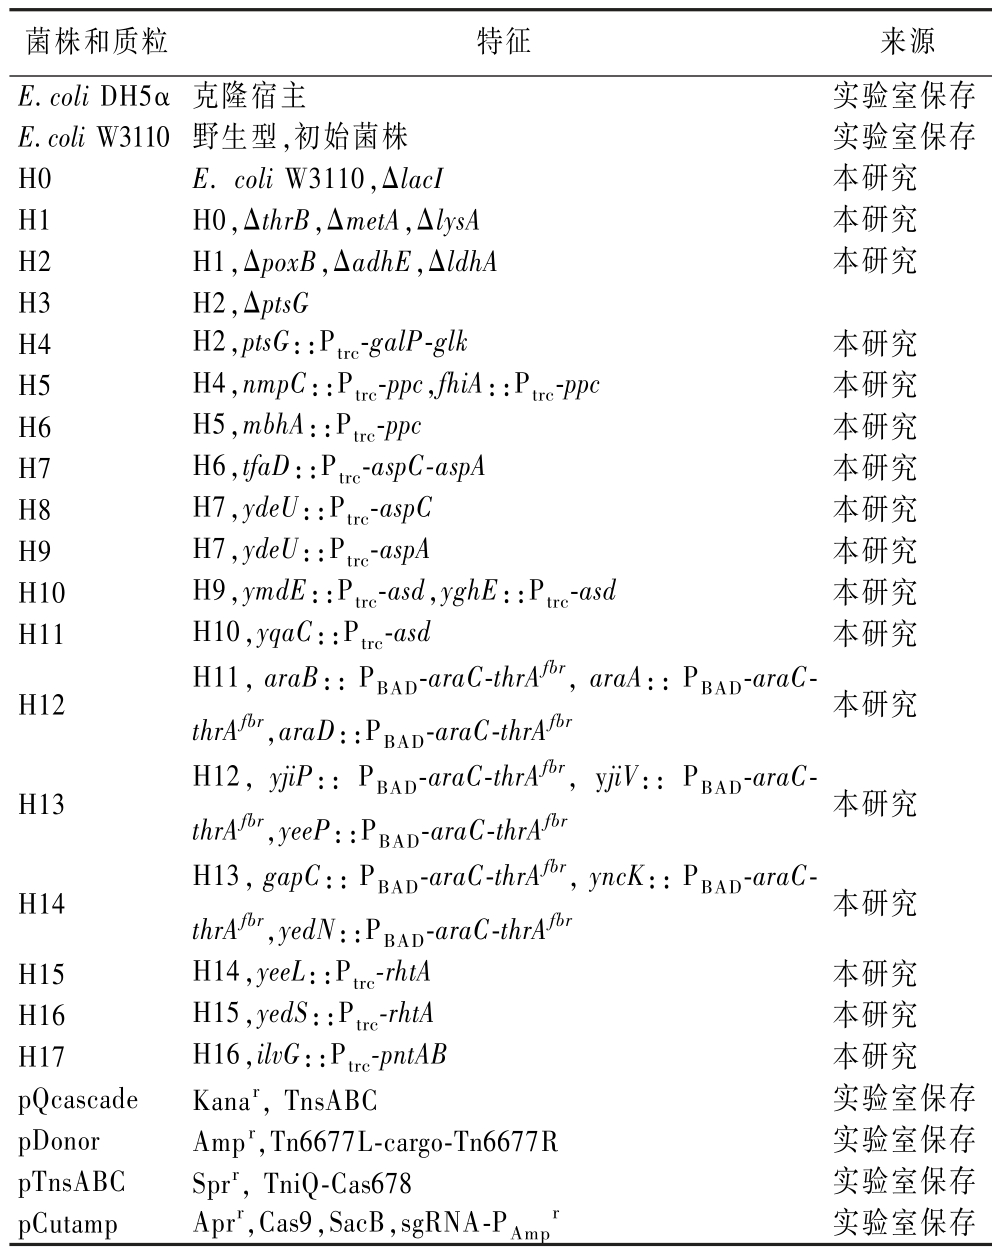
菌株和质粒特征来源E.coli DH5α 克隆宿主实验室保存E.coli W3110 野生型,初始菌株实验室保存H0E. coli W3110,ΔlacI本研究H1H0,ΔthrB,ΔmetA,ΔlysA本研究H2H1,ΔpoxB,ΔadhE,ΔldhA本研究H3H2,ΔptsG H4H2,ptsG::Ptrc-galP-glk本研究H5H4,nmpC::Ptrc-ppc,fhiA::Ptrc-ppc本研究H6H5,mbhA::Ptrc-ppc本研究H7H6,tfaD::Ptrc-aspC-aspA本研究H8H7,ydeU::Ptrc-aspC本研究H9H7,ydeU::Ptrc-aspA本研究H10H9,ymdE::Ptrc-asd,yghE::Ptrc-asd本研究H11H10,yqaC::Ptrc-asd本研究H12 H11, araB::PBAD-araC-thrAfbr, araA::PBAD-araCthrAfbr,araD::PBAD-araC-thrAfbr本研究H13 H12, yjiP::PBAD-araC-thrAfbr, yjiV::PBAD-araCthrAfbr,yeeP::PBAD-araC-thrAfbr本研究H13,gapC::PBAD-araC-thrAfbr, yncK::PBAD-araCthrAfbr,yedN::PBAD-araC-thrAfbr本研究H15H14,yeeL::Ptrc-rhtA本研究H16H15,yedS::Ptrc-rhtA本研究H17H16,ilvG::Ptrc-pntAB本研究pQcascadeKanar, TnsABC实验室保存pDonorAmpr,Tn6677L-cargo-Tn6677R实验室保存pTnsABCSprr, TniQ-Cas678实验室保存pCutampAprr,Cas9,SacB,sgRNA-PAmp H14 r 实验室保存
1.2 培养基
LB 培养基(g/L):蛋白胨10,NaCl 10,酵母粉5。
摇瓶发酵培养基(g/L):葡萄糖20,(NH4)2 SO4 5,KH2PO4 3,MgSO4·7H2O 2,柠檬酸钠2,FeSO4 0.03,蛋白胨5,酵母粉10,苏氨酸0.2,赖氨酸0.3,甲硫氨酸0.3。
5 L 发酵罐培养基(g/L):葡萄糖10,柠檬酸2,KH2PO4 5,(NH4)2SO4 4,MgSO4·7H2O 1,维生素B1 0.05,L-苏氨酸1,蛋白胨2,酵母粉5,苏氨酸2,甲硫氨酸2,赖氨酸2。
1.3 主要工具酶与试剂
L-苏氨酸, Aladdin 公司; 柠檬酸、 KH2 PO4、(NH4)2SO4、MgSO4·7H2O、葡萄糖、蛋白胨、酵母粉、三氯乙酸, 国药集团化学试剂有限公司; 甲醇(HPLC)、乙腈(HPLC)、3-巯基丙酸、邻苯二甲醛,上海泰坦科技有限公司;NADH 检测试剂盒,苏州格锐思生物科技有限公司;链霉素、氨苄青霉素、卡那霉素、阿普拉霉素,上海麦克林生化科技有限公司;Phanta Max Super-Fidelity DNA Polymerase、ClonExpress ⅡOne Step Cloning Kit、Dpn1,南京诺唯赞生物科技有限公司;胶回收试剂盒、质粒小提试剂盒、细菌基因组DNA 提取试剂盒,天根生化科技有限公司。
1.4 实验方法
1.4.1 菌株构建
本研究使用 CRISPR-Associated Transposases(CAST)基因编辑系统[15]编辑大肠杆菌,该系统具体操作如下,以失活poxB、ldhA 和adhE 为例:将poxB、ldhA 和adhE 碱基输入至ChopChop 中设计N32,4 个连续的N32 使用间隔序列(GTGAACTGCCGAGTAGGTAGCTGATAAC)隔开,pQcascade-3X 质粒交由金斯瑞进行基因合成,携带插入片段的pDonor 质粒,在转座子保守序列Tn6677L 和Tn6677R 中间只保留一段终止子用于对目标基因进行失活。 制备工程菌化转感受态,将pTnsABC 质粒以及pQcascade-3X 质粒共转化至大肠杆菌中,37 ℃培养箱培养16 ~20 h 再转入pDonor 质粒,复苏后涂布至含有氨苄青霉素,卡那霉素抗性和链霉素3 种抗性的LB 固体培养基中37 ℃培养20 ~24 h。 长出单菌落后用接种环挑取少许单菌落重悬至含有3 种抗性以及0.1 mmol/L IPTG 溶液的LB 液体培养基中培养6 ~8 h。 将含有3 种抗性和0.1 mmol/L IPTG 溶液的LB 液体培养基中的菌液涂布至含有3 种抗性以及0.5 mmol/L IPTG 溶液的LB 固体培养基中置于37 ℃培养20 h。 使用验证引物3 个位点进行菌落PCR 验证。
选取3 个位点均失活的单菌落制备转化感受态,将pCutamp 质粒转化感受态中用来消除工具质粒,为了提高质粒消除效率,复苏后将所有菌液转移至含有1 mmol/L 鼠李糖和50 mg/L 阿普拉霉素的5 mL LB液体培养基中培养6 h,再将菌液涂布至含有1 mmol/L鼠李糖和50 mg/L 阿普拉霉素的LB 固体培养基中37 ℃过夜培养。 挑取平板上的单菌落,分别对点到含有氨苄青霉素抗性、卡那霉素抗性和链霉素抗性以及10 g/L 蔗糖的4 种不同LB 固体培养基上,无法同时在3 种抗性板上生长的菌落即消除了3 个质粒,随后在含有蔗糖的LB 固体培养基中挑取该单菌落对点至含有阿普拉霉素的LB 固体培养基以及没有任何抗性的LB 固体培养基中,只能在LB 固体培养基中生长的菌落即消除了pCutamp 质粒的工程菌株。
1.4.2 摇瓶发酵方法
将工程菌接种至含有50 mL LB 培养基的250 mL摇瓶中,37 ℃,200 r/min,培养10 h,以1%接种量接种至45 mL 发酵培养基中,于37 ℃,200 r/min 摇瓶发酵48 h,在葡萄糖消耗完时补充600 g/L 葡萄糖溶液,使用体积分数25%的氨水维持pH 值约为7。
1.4.3 5 L 发酵罐发酵方法
将工程菌株划线至LB 固体培养基,挑取单菌落接种至50 mL LB 液体培养基中,于37 ℃,200 r/min,培养10 h,再以1% 接种量接种至50 mL LB 中,于37 ℃,200 r/min,培养5 h 后,以3%接种量接种至含有1.5 L 发酵培养基的发酵罐中,维持溶氧含量约为30%,转速与溶氧关联,通气量1.5 vvm,通过添加体积分数25%的氨水维持pH 值为7,发酵过程中补充600 g/L 葡萄糖溶液,维持残糖含量为1 ~2 g/L。 在对数生长期结束后添加1 g/L 阿拉伯糖,降低溶氧至20%。
1.4.4 分析方法
取发酵液适当稀释后于10 000 r/min 离心2 min,取600 μL 上清液,加入等体积的100 g/L 三氯乙酸溶液除蛋白,放入4 ℃冰箱1 h 后,12 000 r/min 离心10 min,取上清液使用0.22 μm 无机滤膜过滤后装入液相瓶中待测所使用的色谱柱为为Agilent ZORBAX Eclipes AAA,3.5 μm,使用HPLC 进行分析,波长338 nm。
2 结果与讨论
2.1 副产物及分支代谢途径的阻断
L-高丝氨酸在野生型大肠杆菌中基本不累积,会进一步转化为L-苏氨酸以及L-甲硫氨酸。 另外,L-赖氨酸会与L-高丝氨酸竞争关键前体天冬氨酸-半醛,因此需要敲除thrB(编码高丝氨酸激酶)、metA(编码高丝氨酸琥珀酰转移酶)、lysA(编码二氨基庚氨酸脱羧酶)等来累积L-高丝氨酸[16]。 如图2 所示,通过敲除thrB、metA 和lysA 后得到菌株H1,菌株H1 可以累积1.7 g/L 的L-高丝氨酸,在添加适量缺陷氨基酸后[16],OD600值依旧下降明显,有研究使用自我调控启动子控制缺陷基因对营养缺陷型进行回补[12],菌株生长得到明显改善,说明营养缺陷型对于菌株的生长影响较大。
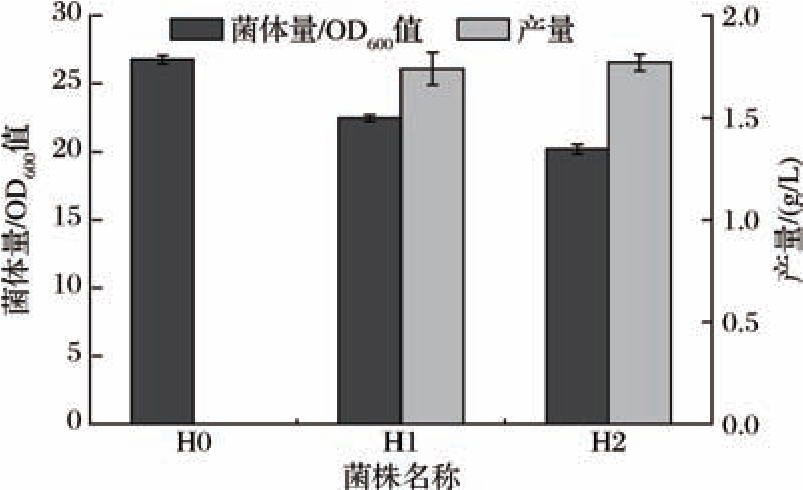
图2 H0、H1 及H2 菌株摇瓶发酵产量及OD600 值
Fig.2 Yields and OD600 values of H0, H1, and H2 strains in shake flasks
为了减少大肠杆菌生产过程中有机酸的累积,敲除了丙酮酸脱氢酶编码基因poxB,乙醛脱氢酶编码基因adhE;D-乳酸脱氢酶编码基因ldhA[17],获得菌株H2,摇瓶发酵后发现基因的敲除对L-高丝氨酸产量并没有明显提升作用,但是产物得率得到了明显提升,从H1 的0.05 g/g 提升至0.08 g/g。
2.2 葡萄糖摄取系统重构
如图3 所示,磷酸转移酶系统(phosphotransferase system,PTS)由酶Ⅰ、组氨酸磷酸载体蛋白(HPr 或NPr)和酶Ⅱ复合物等磷酸转移酶组成,由ptsI、ptsH、crr 和ptsG 等基因编码[18]。 PTS 每转运1 mol 葡萄糖,消耗0.5 mol PEP,会直接影响以PEP 为前体的产物(如芳香族氨基酸、天冬氨酸族氨基酸)的代谢流量。 而半乳糖/氢离子协同转运蛋白(D-galactose/H+symporter,GalP)和葡萄糖激酶(glucokinase,Glk)协同作用也可以转运葡萄糖进入胞内,此时无需消耗PEP[19]。 因此,本研究首先敲除了ptsG,但工程菌株H3 生长缓慢,L-高丝氨酸产量严重下降,说明糖转运受到严重影响。 在此基础上引入galP-glk 系统构建了菌株H4,该菌株可以在培养基中正常生长,L-高丝氨酸产量达到1.93 g/L,相较于H2 提高了13.5%。
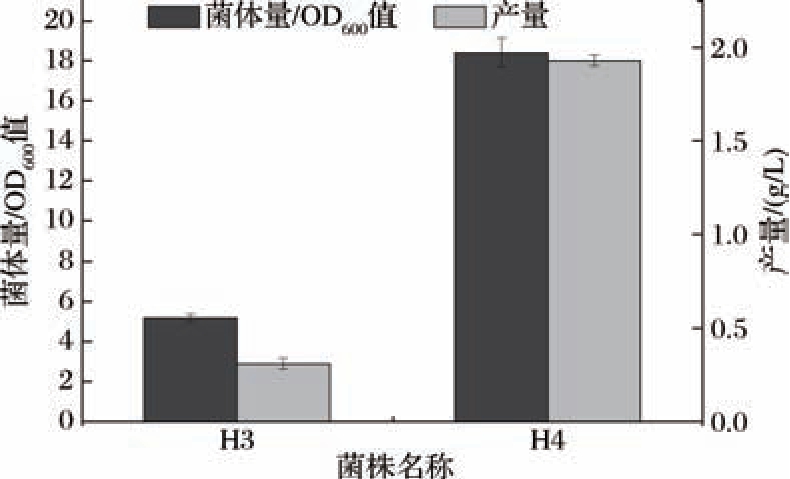
图3 H3 及H4 菌株摇瓶发酵产量及OD600 值
Fig.3 Yields and OD600 values of H3 and H4 strains in shake flasks
2.3 关键前体代谢流的强化
如图4 所示,PEP 由磷酸烯醇式丙酮酸羧化酶(由ppc 编码)催化生成OAA,是L-高丝氨酸的重要前体。 本研究对该基因拷贝数进行了优化,获得了菌株H5 和H6。 H5 产量达到2.43 g/L,相较于H4,提升了25.9%,H6 产量达到2.52 g/L,相较于H5 仅提升了3.7%,说明此时ppc 拷贝数已经足够。 在此基础上,为了提高天冬氨酸通量,将不同拷贝数的aspCaspA 插入到基因组中,获得菌株H7、H8 和H9。 其中H7 的L-高丝氨酸产量达到2.93 g/L,相较于H6 提升了16.2%,说明过表达aspC-aspA 对L-高丝氨酸的累积有一定帮助,而菌株H8 和H9 中只有H9 的产量提升了10.6%,产量达到3.24 g/L,H8 的产量并没有改善,可能是因为AspC 的催化需要谷氨酸作为氨供体[20],而氨供体的不足限制了反应的进行。
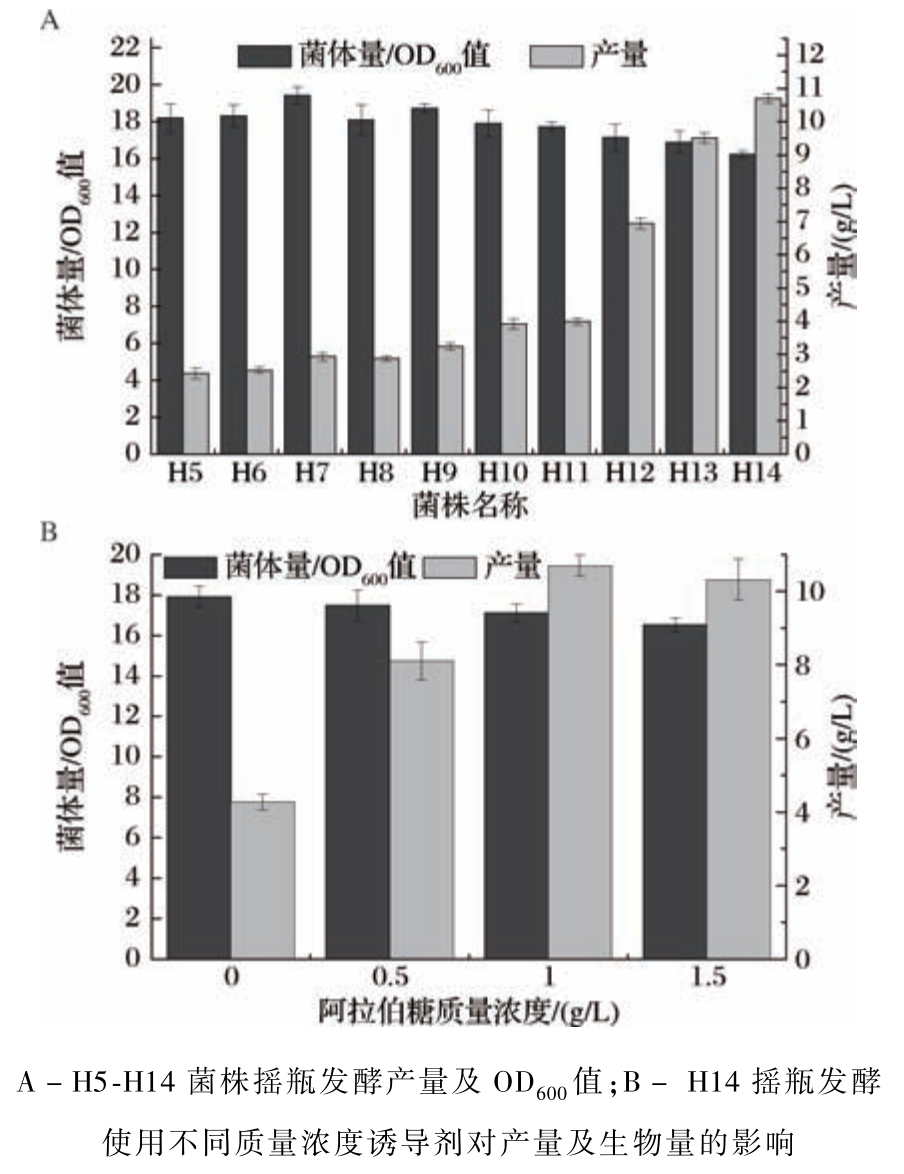
图4 关键前体通量增加对产量的影响
Fig.4 Impact of enhanced key precursor pathway flux on product yield
天冬氨酸半醛脱氢酶(由asd 编码)催化天冬氨酸磷酸向天冬氨酸半醛的转变,对asd 的拷贝数进行了优化,分别获得了菌株H10 和H11。 H10 和H11产量分别达到3.91 g/L 以及3.99 g/L,3 拷贝相较于2 拷贝提升并不明显,可能是下游拉力不足,且辅因子NADPH 不足也可能会限制L-高丝氨酸的累积。
thrA 编码的蛋白同时具有天冬氨酸激酶和高丝氨酸脱氢酶的作用,在L-高丝氨酸代谢中至关重要。因该酶会受到L-苏氨酸的反馈抑制,通过构建抗反馈抑制突变体thrAC1034T 能够消除这一效应[21]。 本研究对该基因进行拷贝数优化,分别获得了不同拷贝数的菌株。 本研究使用不同质量浓度的阿拉伯糖进行诱导,1 g/L 的阿拉伯糖显示出最优效果,H12、H13和H14 产量分别达到了6. 94、9. 51、10. 7 g/L,H12相较于H11 提升了74.2%,H13 相较于H12 提升了37.1%,H14 相较于H13 提升了10.9%,产量的大幅度提升说明过表达thrA 对L-高丝氨酸的产量提升至关重要。 而随着拷贝数提高,产量提升逐渐放缓,一方面可能是天冬氨酸激酶需要ATP 提供能量推动反应,ATP 不足可能会限制反应进行,另一方面高丝氨酸脱氢酶需要NADPH 作为辅因子NADPH 不足也会限制产物的累积。
2.4 转运系统以及辅因子优化
高浓度L-高丝氨酸对于菌体生长会产生抑制作用[16],因此需要及时将胞内L-高丝氨酸转运到胞外。研究发现L-苏氨酸和L-高丝氨酸共用转运蛋白RhtA和RhtB,且RhtA 在转运中发挥了主要作用[22]。 因此,本研究对rhtA 的拷贝数进行了优化,获得菌株H15 和H16,相比于H14,H15 和H16 的生物量有明显提升,产量分别达到13.7 2 g/L 和15.41 g/L。 如图5-B 所示,加强L-高丝氨酸转运后细胞生长速率明显提升,说明将胞内L-高丝氨酸转运至胞外有利于菌体生长,对于L-高丝氨酸的累积也具有积极作用。
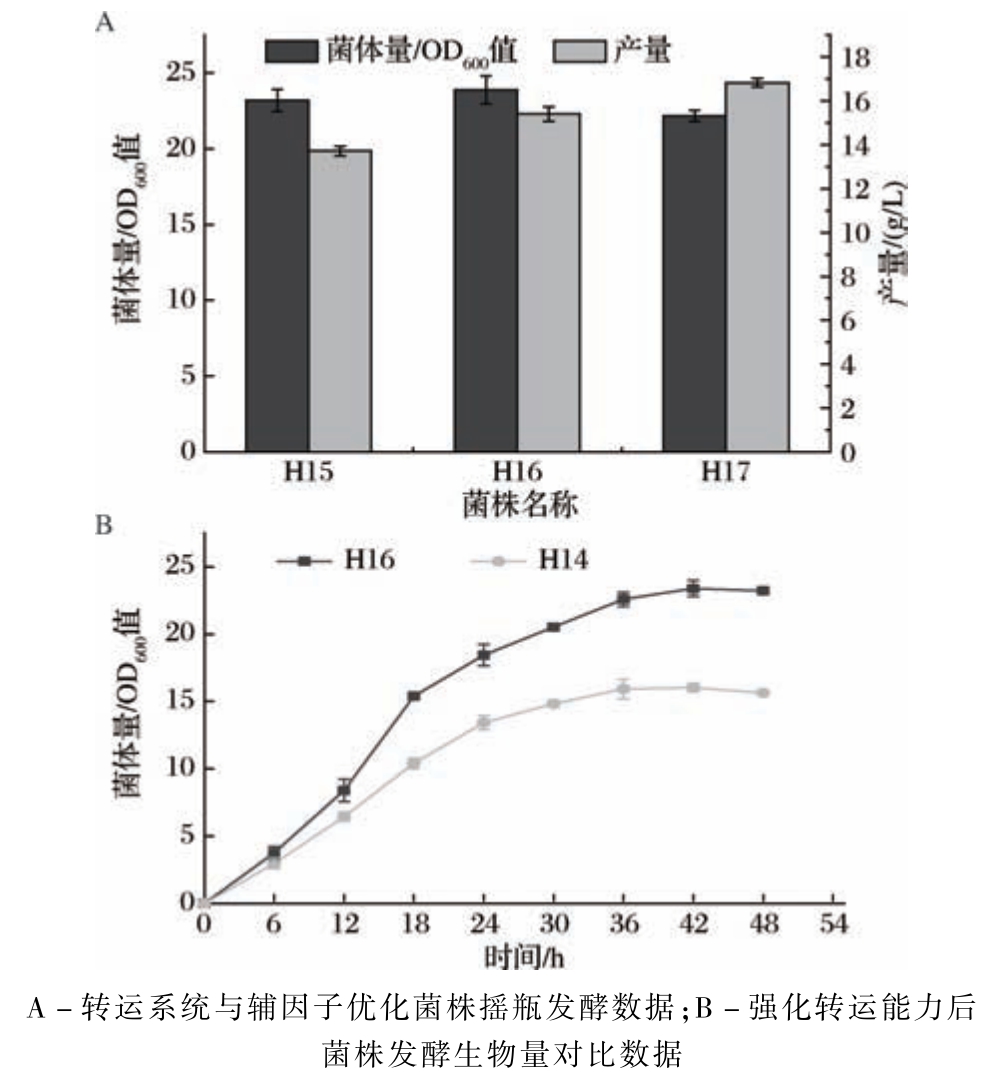
图5 转运系统及辅因子对菌株性能的影响
Fig.5 Effects of the transport system and cofactors on strain performance
L-高丝氨酸合成途径中天冬氨酸半醛脱氢酶以及高丝氨酸脱氢酶都依赖辅因子NADPH[23],NADH/NADPH 控制着细胞内氧化还原平衡,对于产物累积至关重要。 吡啶核苷酸转氢酶(由pntAB 编码)可以将NADH 转化为NADPH,使用Ptrc 启动子启动pntAB并整合进基因组中形成菌株H17,H17 的产量达到了16.83 g/L,相较于H16 提高了9%,说明通过过表达pntAB 提高NADPH 的含量对于L-高丝氨酸的累积有积极作用。
2.5 5 L 发酵罐分批补料发酵
为评估菌株H17 生产L-高丝氨酸的能力,使用5 L发酵罐进行分批补料发酵。 如图6 所示,发酵罐中菌体量的高低会影响到产物的累积,在对数生长期末期诱导thrA 表达,确保菌株在对数生长期生长迅速,相较于已有的研究[10-11],OD600值有明显提高,菌株在发酵60 h 产量达到最高值,此时OD600 值最高值达到了77.9,产量达到105.44 g/L,转化率达到0.413 g/g。
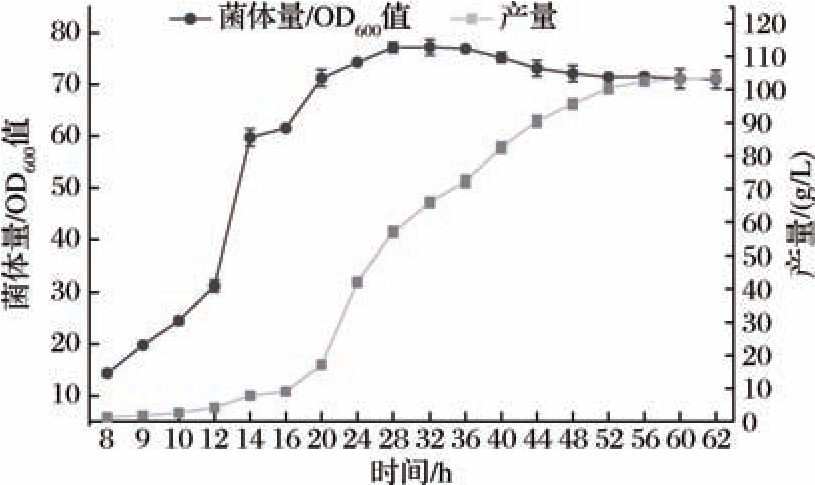
图6 菌株H17 在5 L 发酵罐中OD600 值与L-高丝氨酸产量随时间变化图
Fig.6 L-homoserine production during the fermentation of strain H17 in a 5 L fermenter
3 结论与展望
本研究以野生型大肠杆菌W3110 为出发菌株,基于基因编辑技术进行了组合代谢工程,相较于已有研究(表2),产量及转化率有明显提升。 首先敲除thrB、metA 和lysA 阻断L-高丝氨酸下游代谢以及竞争途径,再敲除poxB、ldhA 和adhE 减少副产物生产,对代谢途径中关键基因ppc、aspC、aspA、asd、thrAfbr 进行多拷贝优化,大大提高了L-高丝氨酸生产能力。 在此基础上过表达转运蛋白编码基因rhtA,并过表达pntAB 强化辅因子供应,成功构建了1 株L-高丝氨酸高产菌株,在5 L 发酵罐中得到了105. 44 g/L 的产量,转化率达到0.413 g/g。
表2 近年L-高丝氨酸工程菌株发酵数据对比
Table 2 Fermentation performance of recently engineered L-homoserine strains
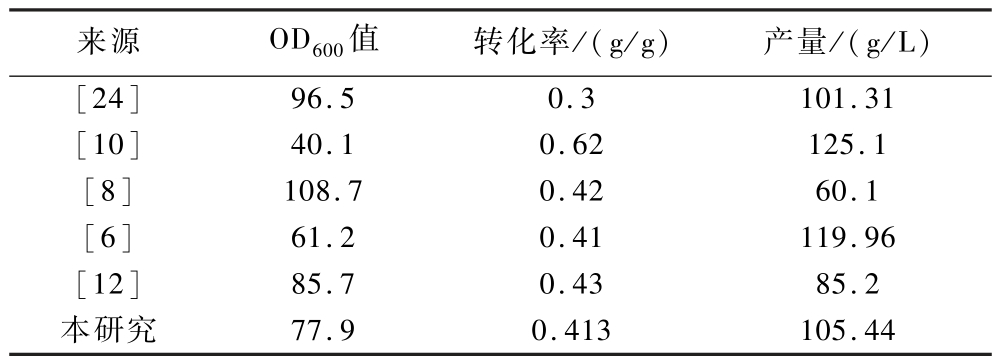
来源OD600 值转化率/(g/g)产量/(g/L)[24]96.50.3101.31[10]40.10.62125.1[8]108.70.4260.1[6]61.20.41119.96[12]85.70.4385.2本研究77.90.413105.44
对于L-高丝氨酸的代谢途径,菌株中整合多拷贝的thrA 和asd 为NADPH 依赖型脱氢酶,辅因子不足会限制L-高丝氨酸的合成,可以考虑引入异源的NADH 依赖型脱氢酶解除辅因子对L-高丝氨酸生产的限制或者引入外源糖酵解途径增加辅因子供应。该菌株中多拷贝的整合可能会造成代谢失衡,后续可以进行转录组分析以及副产物分析,精确控制基因表达优化代谢平衡。
[1] Rumen N M. Inhibition of sickling in erythrocytes by amino acids[J]. Blood, 1975, 45(1):45 -48.
[2] Bryant K I, Dilger R N, Parsons C M, et al. Dietary L-homoserine spares threonine in chicks 1,2[J]. The Journal of Nutrition, 2009,139(7):1298 -1302.
[3] 张辉, 朱莉莉. L-草铵膦化学合成研究进展[J]. 农药学学报,2024, 26(1):1 -7.Zhang H, Zhu L L. Research progress on chemical synthesis of Lglufosinate[J]. Chinese Journal of Pesticide Science, 2024, 26(1):1 -7.
[4] 钟兆月, 马振平, 祁玉婷, 等. 代谢改造谷氨酸棒杆菌高效发酵生产L-高丝氨酸[J]. 食品与发酵工业, 2025, 51(10):1 -8.Zhong Z Y, Ma Z P, Qi Y T, et al. Metabolic engineering of Corynebacterium glutamicum for high-level fermentative production of L-homoserine[J]. Food and Fermentation Industries, 2025, 51(10):1 -8.
[5] 郭秋爽. 代谢工程改造谷氨酸棒状杆菌生产L-高丝氨酸[D].开封:河南大学, 2022.Guo Q S. Metabolic engineering of Corynebacterium glutamicum to produce L-homoserine[D]. Kaifeng:Henan University,2022.
[6] Niu K, Zheng R, Zhang M, et al. Adjustment of the main biosynthesis modules to enhance the production of l-homoserine in Escherichia coli W3110[J]. Biotechnology and Bioengineering, 2025,122(1):223 -232.
[7] Liu P, Zhang B, Yao Z H, et al. Multiplex design of the metabolic network for production of l-homoserine in Escherichia coli[J]. Applied and Environmental Microbiology, 2020, 86(20):e01477 -e01420.
[8] Zhang Y, Wei M H, Zhao G H, et al. High-level production of Lhomoserine using a non-induced, non-auxotrophic Escherichia coli chassis through metabolic engineering[J]. Bioresource Technology,2021, 327:124814.
[9] 刘知非. 编程代谢路径结合调节细胞分裂C + D 期改造大肠杆菌高效合成L-高丝氨酸[D]. 无锡:江南大学, 2024.Liu Z F. High-efficient Production of L-homoserine in Escherichia coli through engineering synthetic pathway combined with regulating C and D period of cell division[D]. Wuxi:Jiangnan University,2024.
[10] Chen Y Y, Huang L G, Yu T, et al. Balancing the AspC and AspA pathways of Escherichia coli by systematic metabolic engineering strategy for high-efficient l-homoserine production[J]. ACS Synthetic Biology, 2024, 13(8):2457 -2469.
[11] Mu Q X, Zhang S S, Mao X J, et al. Highly efficient production of L-homoserine in Escherichia coli by engineering a redox balance route[J]. Metabolic Engineering, 2021, 67:321 -329.
[12] Cai M M, Zhao Z Q, Li X F, et al. Development of a nonauxotrophic L-homoserine hyperproducer in Escherichia coli by systems metabolic engineering[J]. Metabolic Engineering,2022,73:270 -279.
[13] Tang W G, Guo M Q, Jiang X, et al. Expression, purification,and biochemical characterization of an NAD +-dependent homoserine dehydrogenase from the symbiotic Polynucleobacter necessarius subsp. Necessarius[J]. Protein Expression and Purification,2021, 188:105977.
[14] Wu W J, Zhang Y, Liu D H, et al. Efficient mining of natural NADH-utilizing dehydrogenases enables systematic cofactor engineering of lysine synthesis pathway of Corynebacterium glutamicum[J]. Metabolic Engineering, 2019, 52:77 -86.
[15] Zhang Y W, Sun X M, Wang Q Z, et al. Multicopy chromosomal integration using CRISPR-associated transposases[J]. ACS Synthetic Biology, 2020, 9(8)1998 -2008.
[16] Li H, Wang B S, Zhu L H, et al. Metabolic engineering of Escherichia coli W3110 for L-homoserine production[J]. Process Biochemistry, 2016, 51(12):1973 -1983.
[17] Li N, Wang M, Yu S Q, et al. Optimization of CRISPR-Cas9 through promoter replacement and efficient production of L-homoserine in Corynebacterium glutamicum[J]. Biotechnology Journal,2021, 16(8):2100093.
[18] Chapman A G, Fall L, Atkinson D E. Adenylate energy charge in Escherichia coli during growth and starvation[J]. Journal of Bacteriology, 1971, 108(3):1072 -1086.
[19] Henderson P J, Maiden M C. Homologous sugar transport proteins in Escherichia coli and their relatives in both prokaryotes and eukaryotes[J]. Philosophical Transactions of the Royal Society of London. Series B, Biological Sciences, 1990, 326(1236):391 -410.
[20] Song C W, Lee J, Ko Y S, et al. Metabolic engineering of Escherichia coli for the production of 3-aminopropionic acid[J]. Metabolic Engineering, 2015, 30:121 -129.
[21] 张博, 姚臻豪, 柳志强, 等. 代谢工程改造大肠杆菌生产L-高丝氨酸[J]. 生物工程学报, 2021, 37(4):1287 -1297.Zhang B, Yao Z H, Liu Z Q, et al. Metabolic engineering of Escherichia coli for L-homoserine production[J]. Chinese Journal of Biotechnology, 2021, 37(4):1287 -1297.
[22] Ding C, Zhang J W, Qiao J F, et al. Identification and engineering efflux transporters for improved L-homoserine production in Escherichia coli[J]. Journal of Applied Microbiology, 2023, 134(4):lxad075.
[23] 张宇, 夏利, 林蓓蓓, 等. 高效合成L-高丝氨酸大肠杆菌基因工程菌株的构建[J]. 食品科学, 2022, 43(6):81 -88.Zhang Y, Xia L, Lin B B, et al. Construction of Escherichia coli chassis for efficient production of L-homoserine[J]. Food Science,2022, 43(6):81 -88.
[24] Liu Z F, Cai M M, Zhou S Q, et al. High-efficient production of L-homoserine in Escherichia coli through engineering synthetic pathway combined with regulating cell division[J]. Bioresource Technology, 2023, 389:129828.