母乳寡糖(human milk oligosaccharides, HMOs)作为人类母乳中第三大有机组分,其含量仅次于乳糖与脂肪。HMOs可以调节婴儿肠道菌群,发挥免疫调节、预防感染、促进发育等作用[1]。在已经鉴定出的200多种HMOs中,2′-岩藻糖基乳糖(2′-fucosyllactose, 2′-FL)是占比最大的一种,约占其总含量的30%,并且已被美国食品药品监督管理局(Food and Drug Administration, FDA)、欧洲食品安全局(European Food Safety Authority, EFSA)、澳大利亚药监局(Therapeutic Goods Administration, TGA)和中国国家卫生健康委员会(National Health Commission of the People’s Republic of China, NHC)批准可在婴儿配方奶粉及食品中使用[2]。目前2′-FL的生产策略主要为直接提纯法、化学法、酶法和微生物法。相较于其他3种方法,微生物合成法具有低成本、高纯度、绿色环保、规模化、高活性等优势,成为2′-FL合成的主要方法[3]。
大肠杆菌(Escherichia coli)因其遗传背景清晰、基因编辑操作简便且自身含有2′-FL前体物GDP-L-岩藻糖合成途径,是理想的2′-FL合成底盘菌株[4]。2′-FL合成主要有2条途径:从头合成途径和补救途径。从头合成途径利用甘油、甘露糖、葡萄糖等碳源,经糖酵解途径生成果糖-6-磷酸,之后依次在磷酸甘露糖异构酶(mannose-6-phosphate isomerase, ManA)、磷酸甘露糖变位酶(mannose phosphate isomerase, ManB)、甘露糖-1-磷酸鸟苷转移酶(mannose-1-phosphate guanylyltrans ferase, ManC)、GDP-甘露糖-4,6-脱氢酶(GDP-mannose-4,6-dehydratase, Gmd)、GDP-L-岩藻糖合成酶(GDP-L-fucose synthase, WcaG)作用下生成GDP-L-岩藻糖,最终在外源引入的α-1,2-岩藻糖基转移酶(α-1,2-fucosyltrans ferase, FutC)催化作用下催化GDP-L-岩藻糖与乳糖合成2′-FL[5],如图1所示。补救途径则直接利用L-岩藻糖作为底物,经外源的双功能酶L-岩藻糖激酶/GDP-L-岩藻糖焦磷酸化酶(L-fucokinase/GDP-L-fucose pyrophosphorylase, Fkp)催化合成GDP-L-岩藻糖,再进一步合成2′-FL[6]。由于从头合成途径可以利用廉价碳源合成2′-FL,无需添加昂贵的L-岩藻糖,具有更好的工业应用前景[7]。
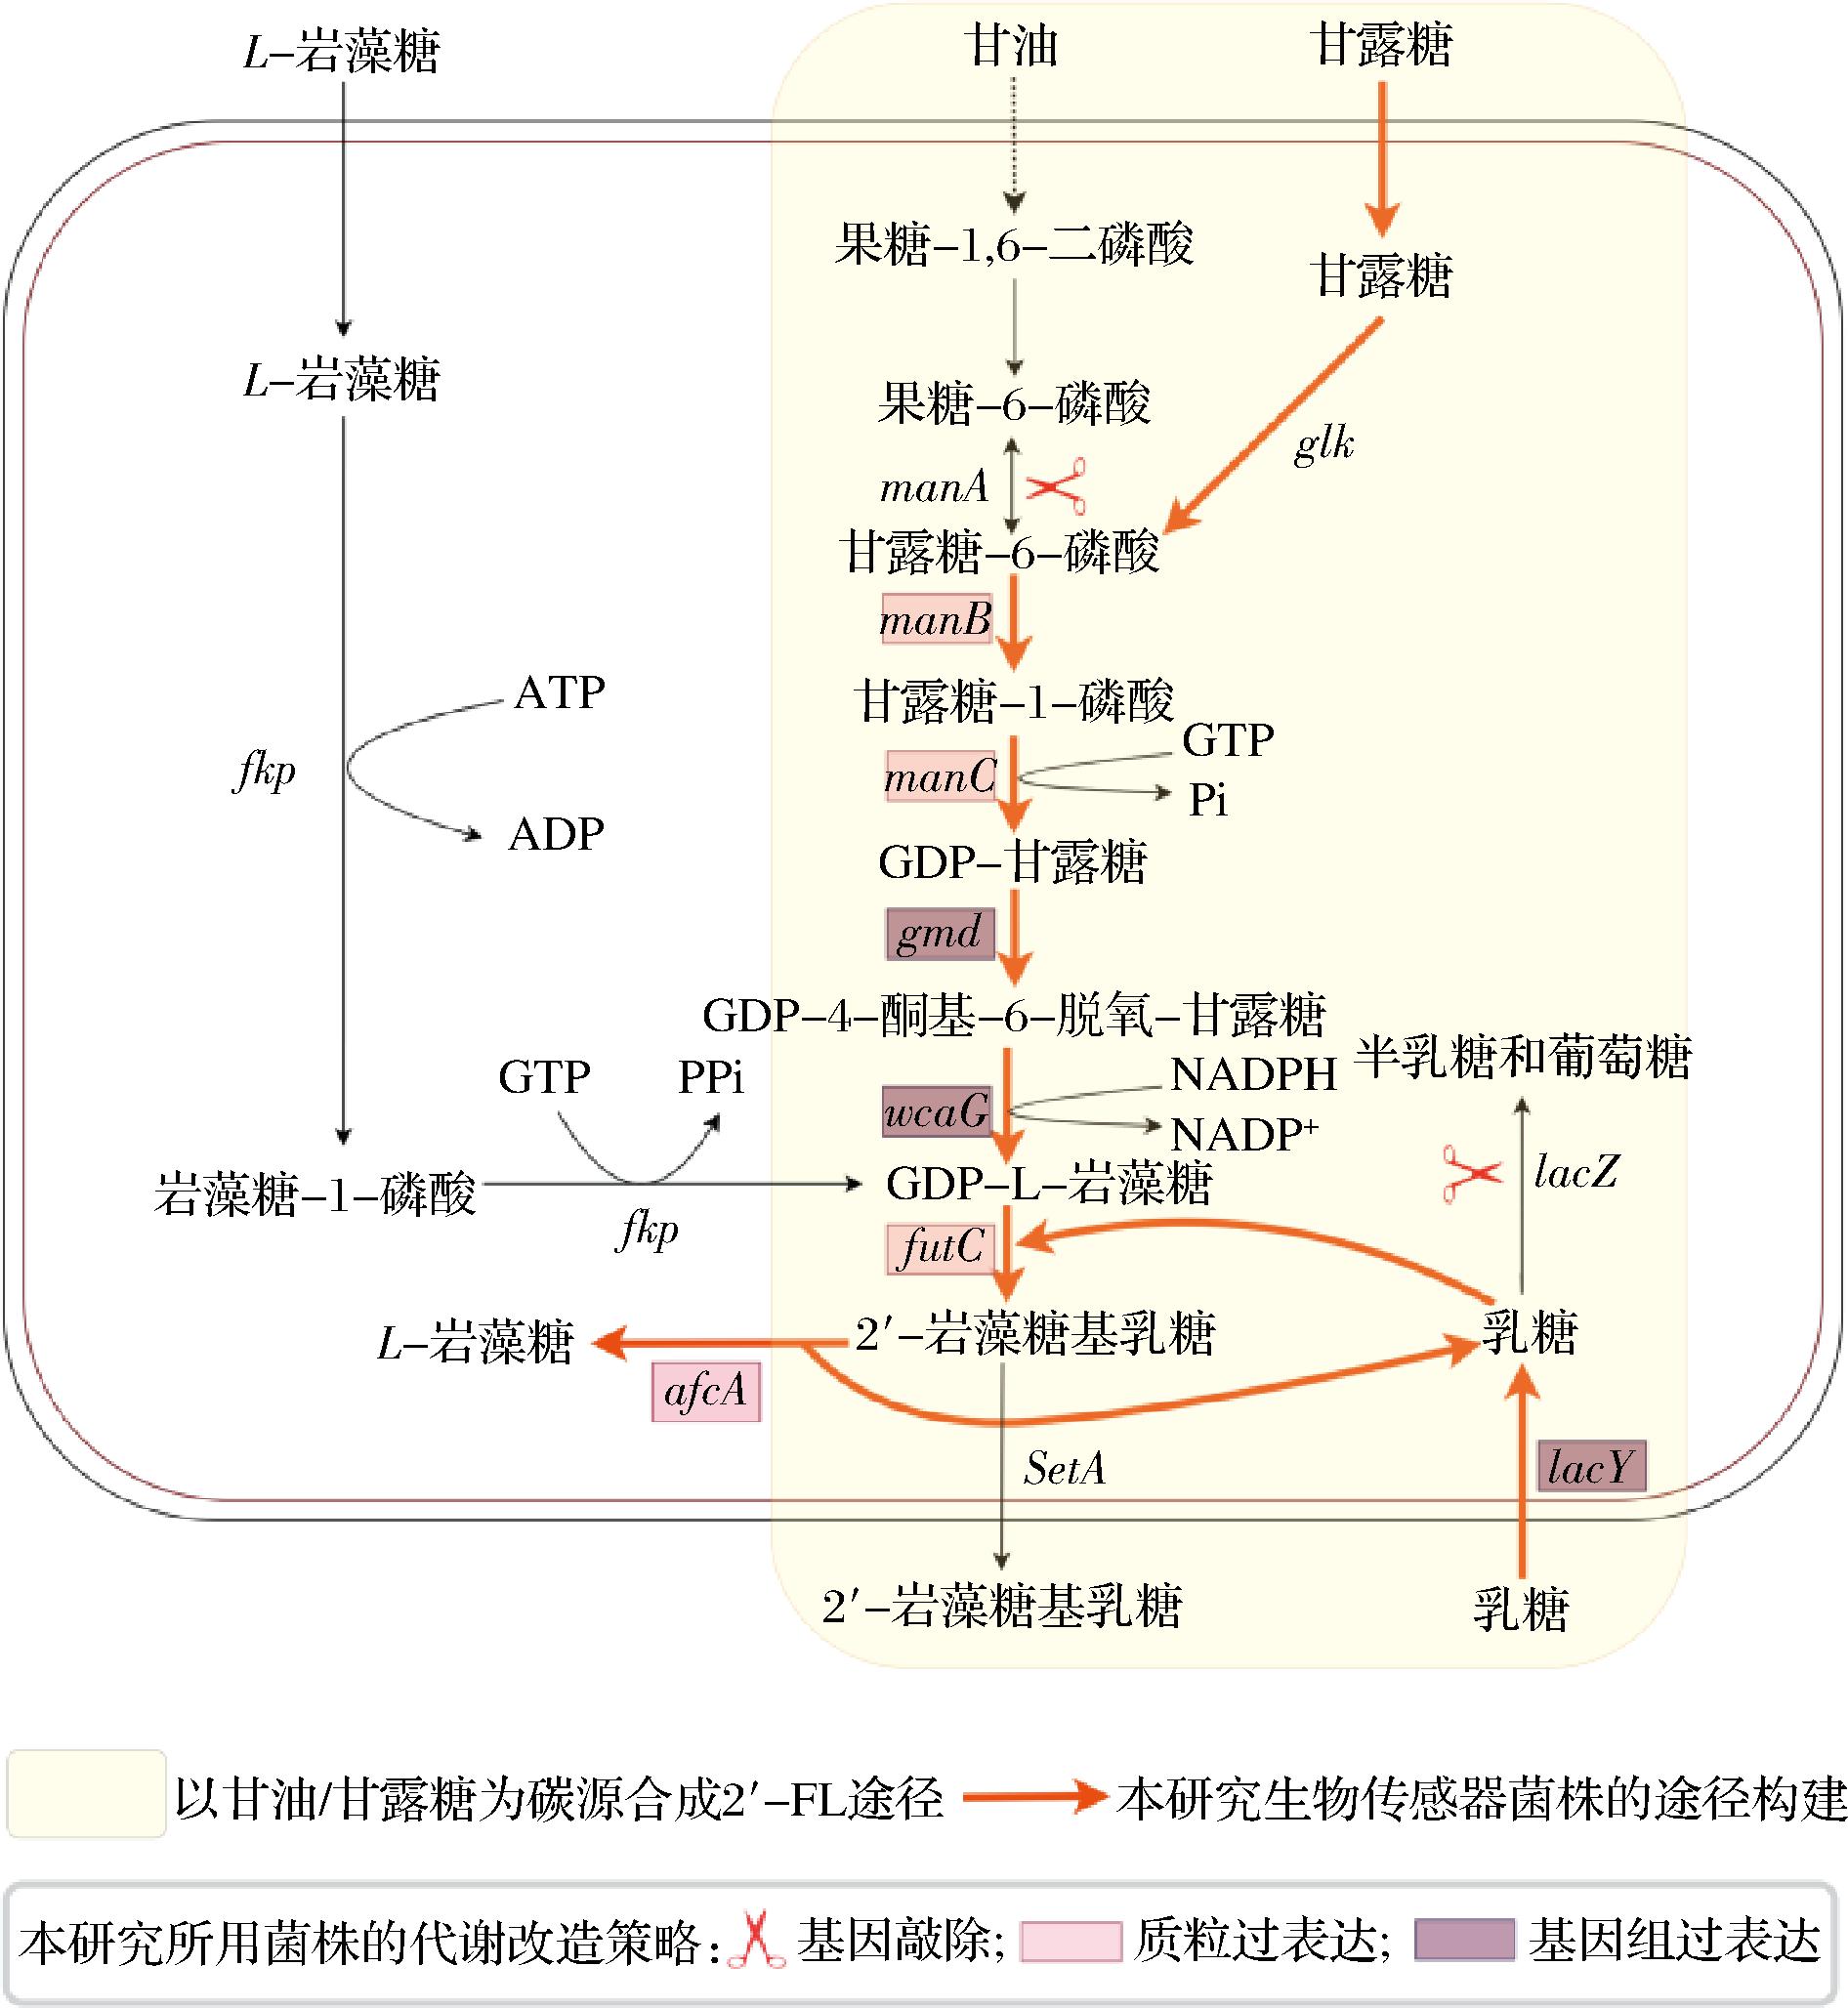
图1 2′-FL合成途径示意图
Fig.1 Schematic diagram of the synthesis pathway of 2′-FL
E.coli从头合成2′-FL时,可以通过强化合成途径关键酶、敲除竞争性代谢途径等多种策略提高2′-FL产量。α-1,2-岩藻糖基转移酶是2′-FL合成关键酶,由于E.coli MG1655中不含有该酶,筛选并引入合适的外源α-1,2-岩藻糖基转移酶,可以显著提高2′-FL的合成效率和产量[8]。例如,有研究在E.coli BL21 Star(DE3)中引入幽门螺杆菌来源的α-1,2-岩藻糖基转移酶基因futC构建2′-FL从头合成途径,提高了2′-FL产量[9]。强化合成途径中其他关键酶基因(如manB、manC、gmd、wcaG)的表达也被证实可以提高2′-FL的产量[10]。此外,敲除UDP-葡萄糖脂质载体转移酶基因(wcaJ)和β-半乳糖苷酶基因(lacZ)可以分别增强关键前体物质GDP-L-岩藻糖和乳糖累积,从而提高2′-FL产量[11]。
近年来,随着合成生物学与代谢工程技术的不断进步,研究人员致力于运用更多样化的策略及工具构建2′-FL生产菌种[12]。而将生物传感器作为调控或监测工具用于2′-FL高通量筛选的相关研究较为少见。因此,开发基于2′-FL生物传感器的高通量筛选平台,对提升2′-FL高产菌株意义重大。本团队在E.coli合成3′-岩藻糖基乳糖(3′-fucosyllactose, 3′-FL)的研究中,通过引入两歧双歧杆菌JCM1254来源的α-1,3/4-L-岩藻糖苷酶(α-1,3/4-L-fucosidase, AfcB),构建3′-FL全细胞生物传感器,使菌株可以利用分解3′-FL产生的岩藻糖作为唯一碳源生长,3′-FL产量越高,被AfcB水解生成的岩藻糖越多,菌株生长越快。该策略通过使产物合成与菌株生长相耦联,成功助力了3′-FL高产菌株的进化筛选[13],也为2′-FL高产菌株选育提供了良好的借鉴。
本研究以实验室前期构建获得的E.coli L1为出发菌株,该菌株在E.coli MG1655的基础上敲除甘露糖和乳糖降解基因manA和lacZ,并在原lacZ基因处以Ptrc启动子过表达wcaG、gmd和lacY基因[14],具备积累2′-FL合成所需前体GDP-L-岩藻糖和乳糖的能力。在此基础上,本研究对2′-FL合成途径关键酶ManB、ManC和FutC进行过表达,以此实现该合成途径的构建与优化。之后,通过引入两歧双歧杆菌JCM1254来源的α-1,2-L-岩藻糖苷酶AfcA构建2′-FL全细胞生物传感器,该酶可将2′-FL分解为岩藻糖,使菌体将岩藻糖作为唯一碳源,将2′-FL合成能力与菌株生长水平相偶联[15-16];最后,利用该生物传感器对2′-FL生产菌株突变体库开展进化筛选和高通量鉴定,最终获得2′-FL高产突变菌株,为2′-FL高产菌株选育及其工业化高效生产提供新的思路与技术参考[17]。
1 材料与方法
1.1 材料
1.1.1 菌株、质粒与引物
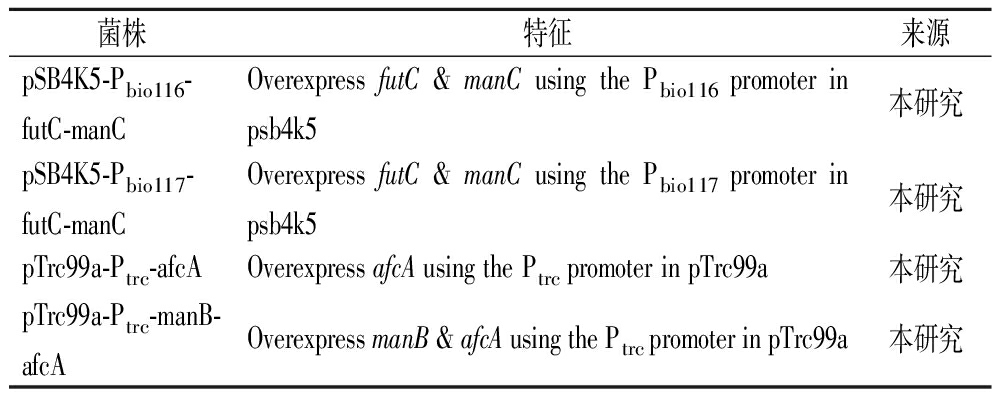
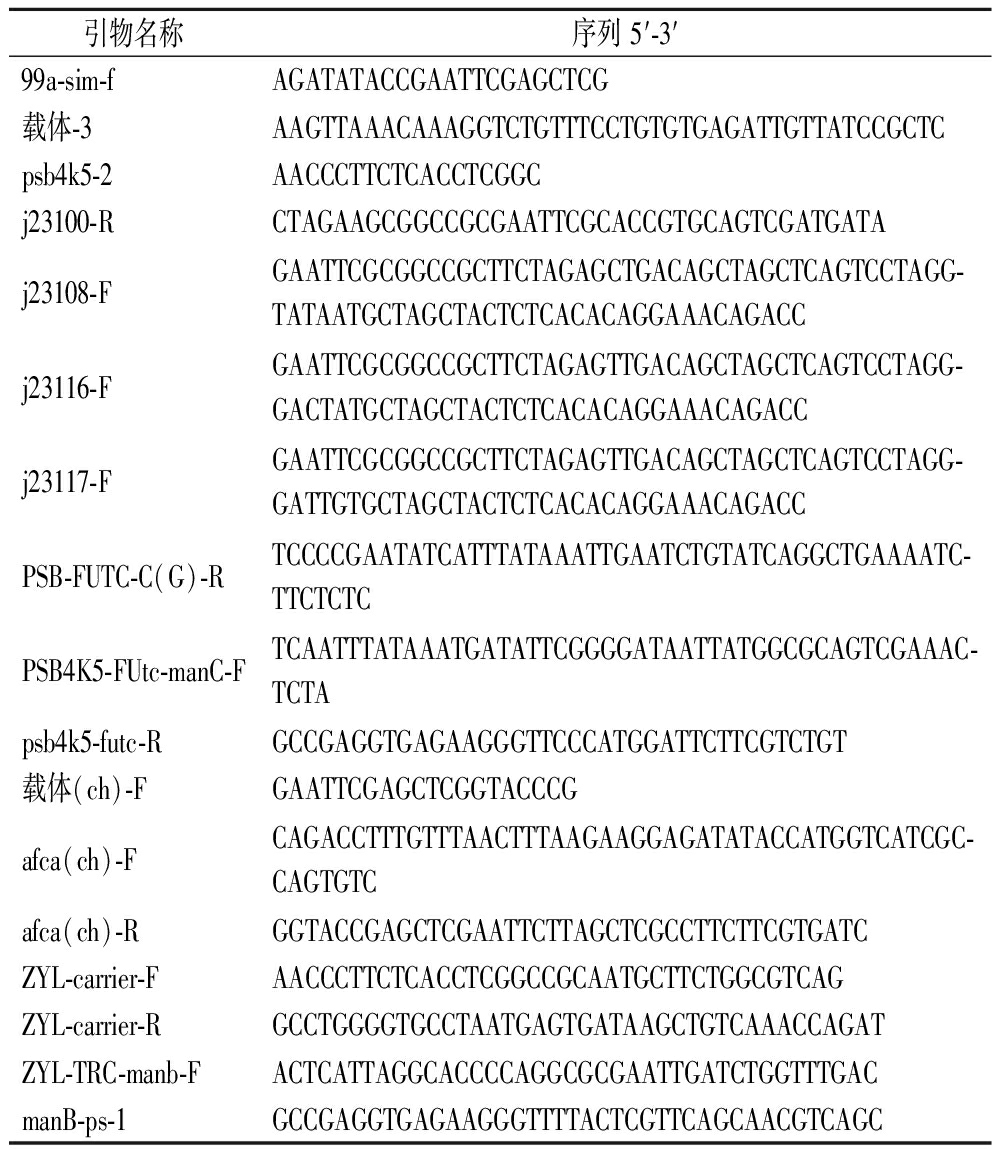
本研究所采用的菌株及质粒信息见表1,引物信息见表2。
表1 菌株和质粒
Table 1 Strains and plasmids
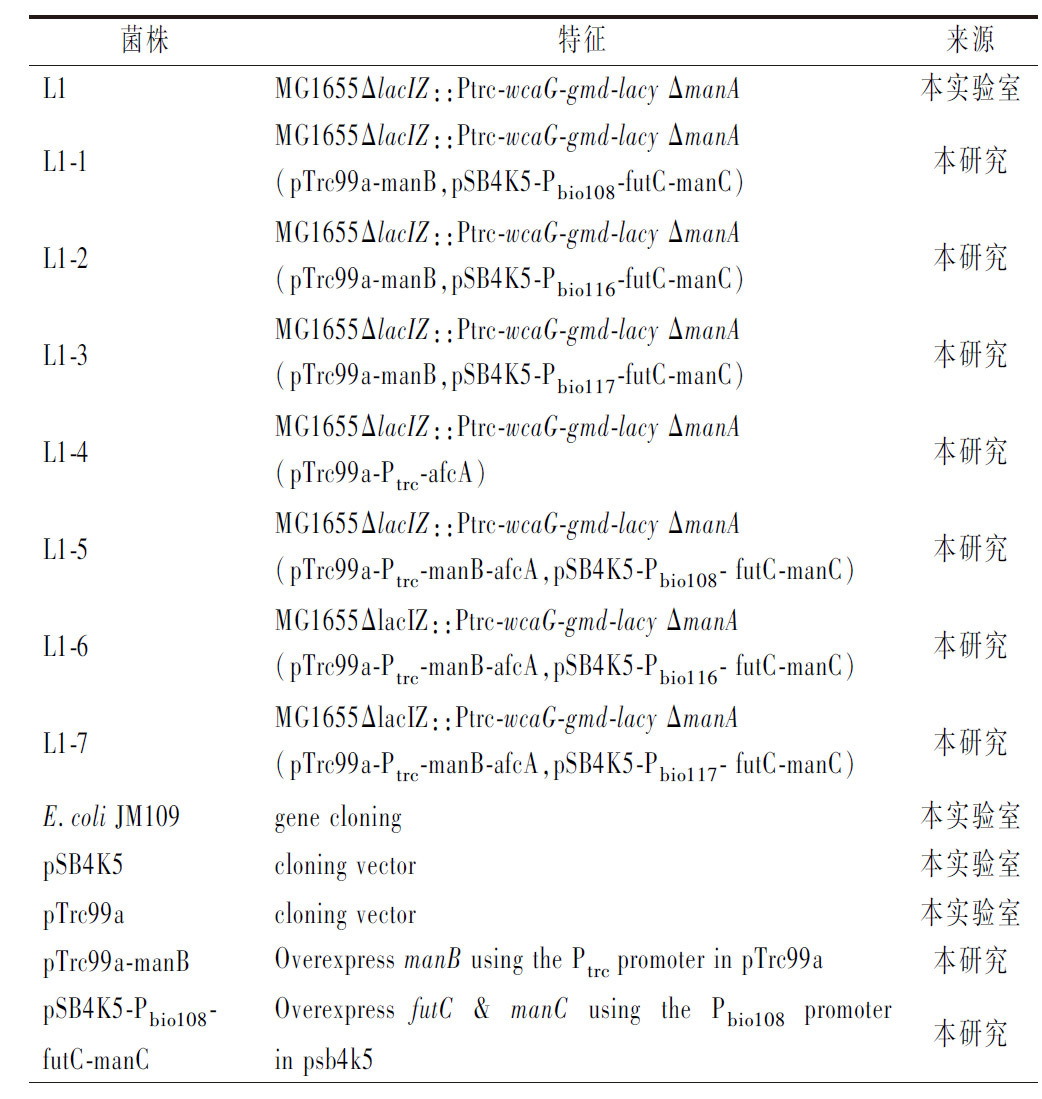
菌株特征来源L1MG1655ΔlacIZ::Ptrc-wcaG-gmd-lacy ΔmanA本实验室L1-1MG1655ΔlacIZ::Ptrc-wcaG-gmd-lacy ΔmanA(pTrc99a-manB,pSB4K5-Pbio108-futC-manC)本研究L1-2MG1655ΔlacIZ::Ptrc-wcaG-gmd-lacy ΔmanA(pTrc99a-manB,pSB4K5-Pbio116-futC-manC)本研究L1-3MG1655ΔlacIZ::Ptrc-wcaG-gmd-lacy ΔmanA(pTrc99a-manB,pSB4K5-Pbio117-futC-manC)本研究L1-4MG1655ΔlacIZ::Ptrc-wcaG-gmd-lacy ΔmanA(pTrc99a-Ptrc-afcA)本研究L1-5MG1655ΔlacIZ::Ptrc-wcaG-gmd-lacy ΔmanA(pTrc99a-Ptrc-manB-afcA,pSB4K5-Pbio108- futC-manC)本研究L1-6MG1655ΔlacIZ::Ptrc-wcaG-gmd-lacy ΔmanA(pTrc99a-Ptrc-manB-afcA,pSB4K5-Pbio116- futC-manC)本研究L1-7MG1655ΔlacIZ::Ptrc-wcaG-gmd-lacy ΔmanA(pTrc99a-Ptrc-manB-afcA,pSB4K5-Pbio117- futC-manC)本研究E.coli JM109gene cloning本实验室pSB4K5cloning vector本实验室pTrc99acloning vector本实验室pTrc99a-manBOverexpress manB using the Ptrc promoter in pTrc99a本研究pSB4K5-Pbio108-futC-manCOverexpress futC & manC using the Pbio108 promoter in psb4k5本研究
续表1
菌株特征来源pSB4K5-Pbio116-futC-manCOverexpress futC & manC using the Pbio116 promoter in psb4k5本研究pSB4K5-Pbio117-futC-manCOverexpress futC & manC using the Pbio117 promoter in psb4k5本研究pTrc99a-Ptrc-afcAOverexpress afcA using the Ptrc promoter in pTrc99a本研究pTrc99a-Ptrc-manB-afcAOverexpress manB & afcA using the Ptrc promoter in pTrc99a本研究
表2 引物
Table 2 Primers
引物名称序列 5'-3'99a-sim-fAGATATACCGAATTCGAGCTCG载体-3AAGTTAAACAAAGGTCTGTTTCCTGTGT-GAGATTGTTATCCGCTCpsb4k5-2AACCCTTCTCACCTCGGCj23100-RCTAGAAGCGGCCGCGAATTCGCACCGTGCAGTCGATGATAj23108-FGAATTCGCGGCCGCTTCTAGAGCTGA-CAGCTAGCTCAGTCCTAGG-TATAATGCTAGCTACTCTCA-CACAGGAAACAGACCj23116-FGAATTCGCGGCCGCTTCTAGAGTTGA-CAGCTAGCTCAGTCCTAGG-GACTATGCTAGCTACTCTCACA-CAGGAAACAGACCj23117-FGAATTCGCGGCCGCTTCTAGAGTTGA-CAGCTAGCTCAGTCCTAGG-GATTGTGCTAGCTACTCTCACA-CAGGAAACAGACCPSB-FUTC-C(G)-RTCCCCGAATATCATTTATAAATTGAATCT-GTATCAGGCTGAAAATC-TTCTCTCPSB4K5-FUtc-manC-FTCAATTTATAAATGATATTCGGGGATAAT-TATGGCGCAGTCGAAAC-TCTApsb4k5-futc-RGCCGAGGTGAGAAGGGTTCCCATGGATTCTTCGTCTGT载体(ch)-FGAATTCGAGCTCGGTACCCGafca(ch)-FCAGACCTTTGTTTAACTTTAAGAAGGAGA-TATACCATGGTCATCGC-CAGTGTCafca(ch)-RGGTACCGAGCTCGAATTCTTAGCTCGCCTTCTTCGTGATCZYL-carrier-FAACCCTTCTCACCTCGGCCGCAATGCTTCTGGCGTCAGZYL-carrier-RGCCTGGGGTGCCTAATGAGTGATAAGCTGTCAAACCAGATZYL-TRC-manb-FACTCATTAGGCACCCCAGGCGCGAATTGATCTGGTTTGACmanB-ps-1GCCGAGGTGAGAAGGGTTTTACTCGTTCAGCAACGTCAGC
1.1.2 主要试剂与药品
2×Es Taq DNA聚合酶,康为世纪生物科技有限公司;PrimerStar DNA聚合酶、1kb DNA Ladder Marker宝生物工程有限公司;Basic Assembly Mix,北京全式金生物技术有限公司;质粒提取试剂盒、DNA凝胶回收试剂盒、PCR纯化回收试剂盒,Omega公司;酵母提取物和蛋白胨(分析纯),赛默飞世尔科技公司;NaCl(分析纯),上海源叶生物科技有限公司;葡萄糖和乳糖(分析纯),国药化学试剂有限公司;岩藻糖和2′-FL标品(分析纯),上海惠诚生物有限公司;甘油(分析纯),天津化学试剂二厂。
1.1.3 主要仪器
PTC-200型PCR基因扩增仪,德国艾本德股份公司;DYY-III-6B稳压稳流电泳仪,北京市六一仪器厂;1200高效液相分析色谱仪,安捷伦科技有限公司;Bio电击转化仪,美国BTX公司;TM5酶标仪,北京普析通用仪器有限责任公司;TGL-16C台式离心机,上海安亭科技仪器厂;HG75-3电热恒温培养箱,南京实验仪器厂;T&J-Btype×2发酵罐,迪必尔生物工程(上海)有限公司。
1.1.4 培养基
LB培养基(g/L):蛋白胨 10、酵母提取物 5、NaCl 5。
M9测试培养基(g/L):乳糖 1、甘露糖 10、KH2PO4 2、NH4Cl 2、柠檬酸 0.85、MgSO4·7H2O 1.4、硫胺素 0.004 5、酵母粉 0.25、Mops 40、10 mL/L微量元素溶液,调节pH值至7.0。
M9发酵培养基(g/L):甘油 10、乳糖 5、甘露糖 10、KH2PO4 2、NH4Cl 2、柠檬酸 1.7、MgSO4·7H2O 1.4、硫胺素 0.004 5,酵母粉 5、Mops 40、10 mL/L微量元素溶液,调节pH值至7.0。
无碳源培养基:KH2PO4 2、NH4Cl 2、柠檬酸 0.85、MgSO4·7H2O 1.4、硫胺素 0.004 5、酵母粉 0.25、Mops 40、10 mL/L微量元素溶液,调节pH值至7.0。
微量元素溶液(g/L):FeSO4·7H2O 10、ZnSO4·7H2O 2.2、CuSO4·5H2O 1、MnSO4·H2O 0.38、Na2B4O7·10H2O 0.02、(NH4)6Mo7O24 0.1、CaCl2 2。
培养过程中,根据菌种抗性,加入终质量浓度为25 mg/L的卡那霉素或100 mg/L的氨苄青霉素。
1.2 实验方法
1.2.1 质粒构建
以pTrc99a质粒为模板,使用引物99a-sim-f/载体-3进行PCR扩增得到线性pTrc99a载体片段;以野生型E.coli MG1655基因组DNA为模板,使用引物TmanB-F/99a-sim-r进行PCR扩增得到manB基因片段。使用无缝克隆酶将manB、pTrc99a线性载体片段连接后化转至E.coli JM109感受态细胞中,通过菌落PCR反应鉴定阳性克隆,经测序后获得质粒pTrc99a-manB。
以pSB4K5质粒为模板,使用引物pSB4K5-2/j23100-R进行PCR扩增得到线性pSB4K5载体片段;以携带全基因合成的幽门螺杆菌来源的FutC编码基因futC的pUC57质粒为模板,分别使用引物j23108-F/PSB-FUTC-C(G)-R、j23116-F/PSB-FUTC-C(G)-R和j23117-F/PSB-FUTC-C(G)-R进行PCR扩增得到带有不同强度启动子的futC基因片段;以野生型E.coli MG1655基因组DNA为模板,使用引物pSB4K5-FUtc-manC-F/psb4k5-futc-R进行PCR扩增得到manC基因片段。使用无缝克隆酶将pSB4K5线性载体片段、futC和manC基因片段连接后化转至E.coli JM109感受态细胞中,通过菌落PCR反应鉴定阳性克隆,经测序后获得质粒pSB4K5-Pbio108-futC-manC、pSB4K5-Pbio116-futC-manC和pSB4K5-Pbio117-futC-manC。
以pTrc99a质粒为模板,使用引物载体(ch)-F/载体-3进行PCR扩增得到线性pTrc99a载体片段;以两歧双歧杆菌JCM1254基因组DNA为模板,使用引物afca(ch)-F/afca(ch)-R进行PCR扩增得到afcA基因片段,使用无缝克隆酶将afcA与pTrc99a线性载体片段连接后化转至E.coli JM109感受态细胞中,通过菌落PCR反应鉴定阳性克隆,经测序后获得质粒pTrc99a-Ptrc-afcA。
以pTrc99a-Ptrc-afcA质粒为模板,使用引物ZYL-carrier-F/ZYL-carrier-R进行PCR扩增得到线性pTrc99a-Ptrc-afcA载体;以pTrc99a-manB质粒为模板,使用引物ZYL-TRC-manb-F/manB-ps-1进行PCR扩增得到manB基因片段,使用无缝克隆酶将manB、pTrc99a-Ptrc-afcA线性载体片段连接后化转至E.coli JM109感受态细胞中,通过菌落PCR反应鉴定阳性克隆,经测序后获得质粒pTrc99a-Ptrc-manB-afcA。
1.2.2 菌株构建
将质粒pTrc99a-manB和pSB4K5-Pbio108-futC-manC联合转化至菌株L1中,获得菌株L1-1。采用相同的策略,将质粒pTrc99a-manB与pSB4K5-Pbio116-futC-manC联合转化至菌株L1中,获得菌株L1-2。将质粒pTrc99a-manB与pSB4K5-Pbio117-futC-manC联合转化至菌株L1中,获得菌株L1-3。将质粒pTrc99a-Ptrc-afcA转化至菌株L1中,得到菌株L1-4。将质粒pTrc99a-Ptrc-manB-afcA,分别与pSB4K5-Pbio108-futC-manC、pSB4K5-Pbio116-futC-manC和pSB4K5-Pbio117-futC-manC联合转化到在菌株L1中,得到菌株L1-5、L1-6和L1-7。
1.2.3 菌株L1对不同碳源的利用能力测试
将菌株L1接种到分别添加了终质量浓度为5 g/L的岩藻糖、葡萄糖、甘露糖和乳糖的无碳源培养基中进行发酵培养24 h,每隔8 h测量菌株的生长情况。
1.2.4 菌株L1-4对外源2′-FL利用能力测试
将菌株L1-4接种到分别添加了0、1、5、10、20、30 g/L 2′-FL的无碳源培养基中发酵培养24 h,每隔8 h测量菌株的生长情况。
1.2.5 突变体库构建及筛选
以未经UV照射的菌株L1-5为对照。将菌株L1-5在液体LB中培养OD600值至1.4左右,将其转移至培养皿中置于距离30 W紫外灯35 cm处进行常压室温紫外照射诱变处理1 min,分别得到突变体库L1-5-1、L1-5-2、L1-5-3、L1-5-4、L1-5-5和L1-5-6。将完成紫外诱变的E.coli按照1%接种量转入到含有1 mL M9测试培养基的24孔深孔板中,每隔24 h传代,共传8代。传代完成后选择OD600值达到1.5以上的突变株稀释涂布于M9测试培养基琼脂平板进行单克隆分离,37 ℃培养36 h后挑选生长速度较快、菌落直径较大的突变株。将筛选得到的突变株传代至菌株中传感器质粒pTrc99a-Ptrc-manB-afcA丢失,之后将2′-FL生产质粒pTrc99a-manB化转至突变株内,利用96孔深孔板发酵检测2′-FL产量。
1.2.6 2′-FL发酵生产及检测方法
利用24孔深孔板发酵时,将菌种在LB培养基中过夜培养活化后作为种子,以2%的接种量转接到含有1 mL M9发酵培养基的孔板中,37 ℃培养48 h后检测2′-FL产量。
利用5 L发酵罐发酵时,菌株经LB培养基活化后,以5%接种量接种于120 mL M9发酵培养基中,37 ℃培养12 h作为种子。将种子培养液转移到含有2 L M9发酵培养基的5 L发酵罐中。发酵开始后,维持温度为37 ℃,通过调节通气量和搅拌速度控制溶解氧(dissolved oxygen,DO)水平在20%~30%,利用氨水维持pH值在7.0左右。发酵过程中及时补加甘油和乳糖并通过测量OD600值来监测菌株生长状态[18]。
2′-FL浓度通过高效液相色谱法配备蒸发光散射检测器和Carbohydrate ES(5 μm,250 mm×4.6 mm)色谱柱进行检测,使用不同浓度的2′-FL标准溶液获得的标准曲线计算2′-FL的浓度[19]。
2 结果与分析
2.1 2′-FL从头合成途径关键酶FutC和ManC表达水平优化
以实验室前期构建菌株L1为出发菌株,该菌株由于敲除了E.coli MG1655的lacZ和manA基因,可以利用甘油进行菌株生长,利用甘露糖为原料积累2′-FL合成所需前体GDP-L-岩藻糖[14],如图1所示。由于在L1中manB和manC基因所表达的酶活力相对较低,并且缺少2′-FL合成关键酶FutC。因此,本研究以菌株L1为基础,利用质粒pSB4K5分别使用Biobrick系列启动子PJ23108、PJ23116和PJ23117过表达manC和来自幽门螺杆菌的futC基因,得到pSB4K5-Pbio108-futC-manC、pSB4K5-Pbio116-futC-manC和pSB4K5-Pbio117-futC-manC质粒,将以上3个质粒分别与高拷贝质粒pTrc99a过表达manB得到的pTrc99a-manB质粒联合转化至菌株L1中获得菌株L1-1、L1-2和L1-3[20]。获得2′-FL生产能力后,利用M9发酵培养基,在深孔板中对以上3株菌的2′-FL产量进行测定。结果如图2所示,相较于菌株L1-2(0.34 g/L)和L1-3(0.16 g/L),菌株L1-1在发酵48 h后2′-FL产量最高,达到0.9 g/L。该结果表明在菌株L1的基础上过表达futC、manC和manB基因后具有2′-FL生产能力,并且在菌株L1中适当提高关键酶基因的表达水平对提高2′-FL产量具有积极作用。
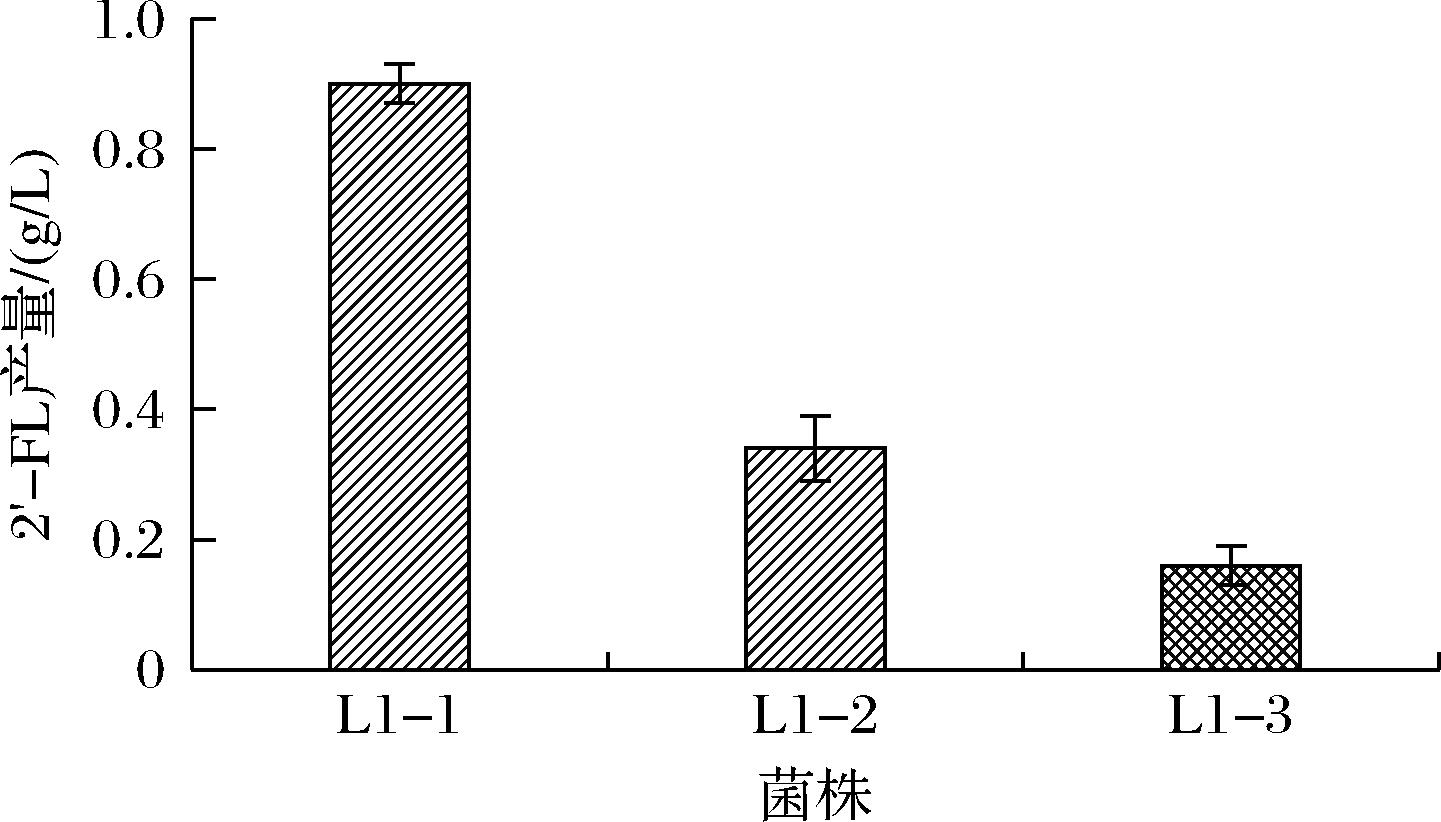
图2 菌株L1-1、L1-2和L1-3的2′-FL产量
Fig.2 2′-FL production of strains L1-1, L1-2, and L1-3
2.2 2′-FL生物传感器的构建
研究表明,来源于两歧双歧杆菌JCM1254的GH95家族α-1,2-L-岩藻糖苷酶AfcA能够特异性水解2′-FL非还原末端岩藻糖与半乳糖之间的α-1,2糖苷键生成岩藻糖和乳糖[21]。因此,本研究将该酶编码afcA基因引入2′-FL合成菌株,构建全细胞生物传感器。该传感器系统能够使合成的2′-FL水解生成岩藻糖,岩藻糖能够作为唯一碳源被菌株生长利用。2′-FL合成能力越强,水解产生的岩藻糖越多,菌株生长越快,从而将2′-FL合成能力与传感器菌株生长水平相偶联,通过筛选快速生长的菌株即可获得2′-FL高产菌株。
2.2.1 菌株L1岩藻糖利用能力测试
2′-FL生物传感器菌株需将岩藻糖作为唯一碳源生长,因此,本研究使用1.2.3节方法对出发菌株L1进行碳源利用能力测试。结果如图3-a所示,菌株L1由于敲除了manA和lacZ,在单独含甘露糖或乳糖的培养基中几乎不能生长;而在以葡萄糖为碳源和以岩藻糖为碳源的培养基上能够正常生长;发酵24 h后,以岩藻糖为碳源与以葡萄糖为碳源的菌株L1 OD600值分别达到1.05和1.12,菌株L1在岩藻糖培养基中的OD600值整体略低于葡萄糖培养基,推测与碳源代谢效率差异相关。葡萄糖作为E.coli的优选碳源,其代谢途径更成熟、能量转化效率更高。但在岩藻糖培养基中菌株L1也能达到较高的生物量,说明在构建2′-FL生物传感器时菌株L1可以利用岩藻糖为唯一碳源正常生长。
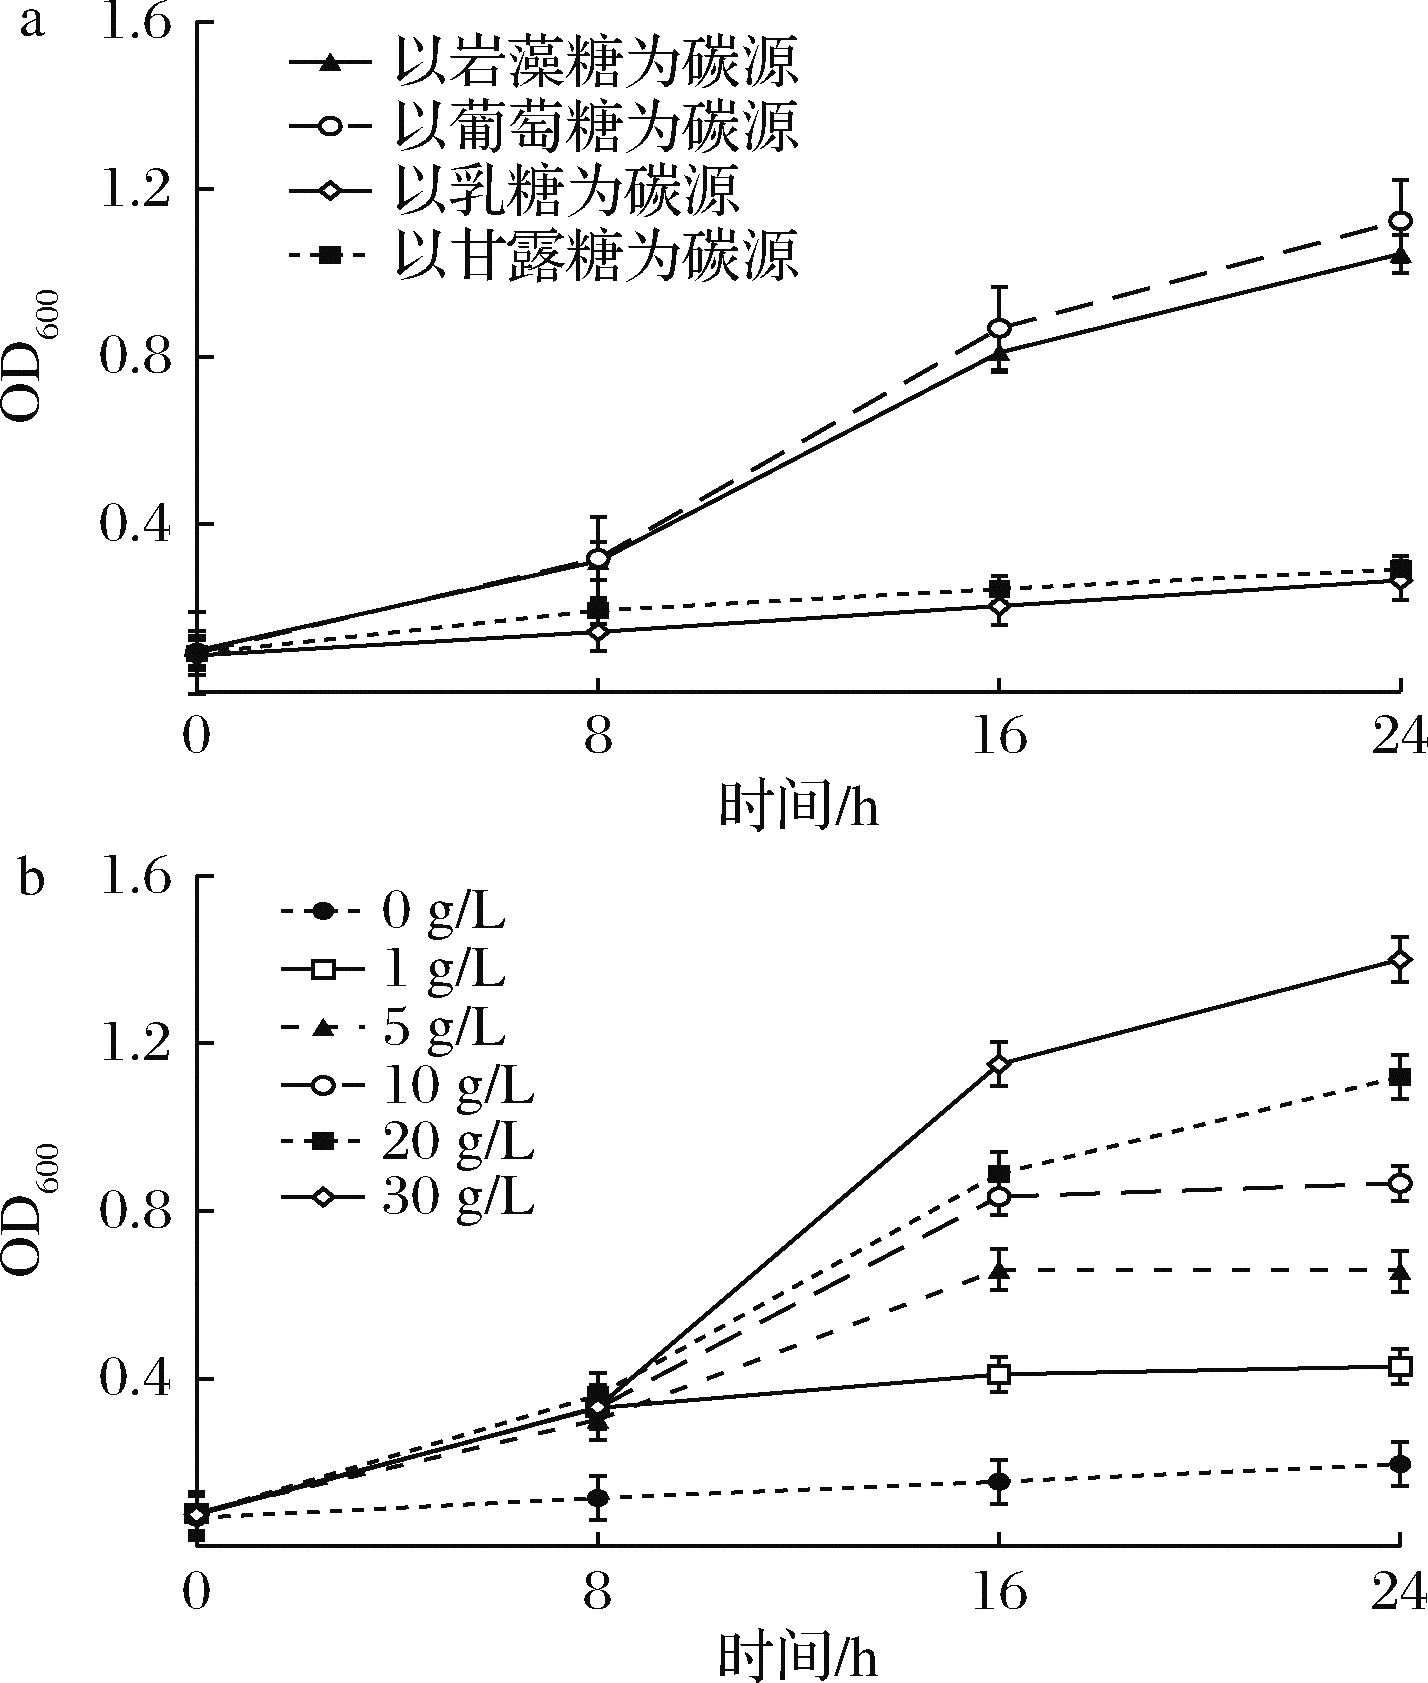
a-菌株L1对不同碳源的利用能力;b-不同2′-FL浓度下菌株L1-4的生长曲线测定
图3 菌株L1对不同碳源的利用能力以及外源添加不同浓度2′-FL生长测试
Fig.3 Growth test of strain L1 on different carbon sources and with exogenous addition of different concentrations of 2′-FL
2.2.2 引入传感器质粒后菌株对外源2′-FL利用能力测试
将过表达afcA的质粒pTrc99a-Ptrc-afcA导入菌株L1,获得菌株L1-4,利用1.2.4节方法对菌株L1-4进行外源添加2′-FL利用能力测试,结果如图3-b所示。以未添加外源2′-FL(0 g/L)的培养基为对照,培养过程中菌株L1-4生长微弱(OD600值<0.2),而随着外源2′-FL添加浓度从1 g/L逐步提升至30 g/L,菌体生长浓度呈明显的剂量依赖性升高。经过24 h发酵结束后,1、5、10、20、30 g/L 2′-FL组的OD600值分别达到 0.42、0.65、0.86、1.12、1.4,且各浓度组的生长速率与最终生物量均显著高于对照组,说明2′-FL能够被AfcA水解成岩藻糖作为碳源,环境中2′-FL含量越高,被AfcA水解产生的岩藻糖越多,菌株利用岩藻糖生长的越好。该结果初步证实了改造宿主菌,使2′-FL产量与其生长水平偶联的可行性,为后续进一步构建优良2′-FL全细胞生物传感器奠定了基础。
2.2.3 2′-FL全细胞生物传感器的构建及验证
将质粒pTrc99a-Ptrc-manB-afcA分别联合pSB4K5-Pbio108-futC-manC,pSB4K5-Pbio116-futC-manC和pSB4K5-Pbio117-futC-manC共转化至菌株L1中,得到菌株L1-5、L1-6和L1-7,使之获得合成2′-FL并将内源合成的2′-FL分解为岩藻糖和乳糖的能力。其中,岩藻糖将作为唯一碳源被细胞利用生长,而乳糖则可重复用于2′-FL合成。因此,在培养基中加入甘露糖和乳糖后,改造后菌株的2′-FL生产与其生长应获得特异性偶联。以不含afcA的菌株L1-1、L1-2和L1-3作为对照菌株,比较菌株L1-5、L1-6、L1-7在M9测试培养基中的生长情况。结果如图4所示,发酵培养24 h后,不含afcA的菌株L1-1、L1-2和L1-3不具有2′-FL水解能力,因此只能微弱生长。菌株L1-5、L1-6和L1-7的生长能力依次降低,发酵培养24 h后,最高OD600值分别为0.48、0.41和0.32,与其2′-FL生产能力相符合。该结果表明,引入afcA构建2′-FL利用途径后,具有较强2′-FL合成能力的菌株具有较快的生长速度,说明2′-FL合成强度与菌株生长水平获得偶联,2′-FL全细胞生物传感器系统构建成功。
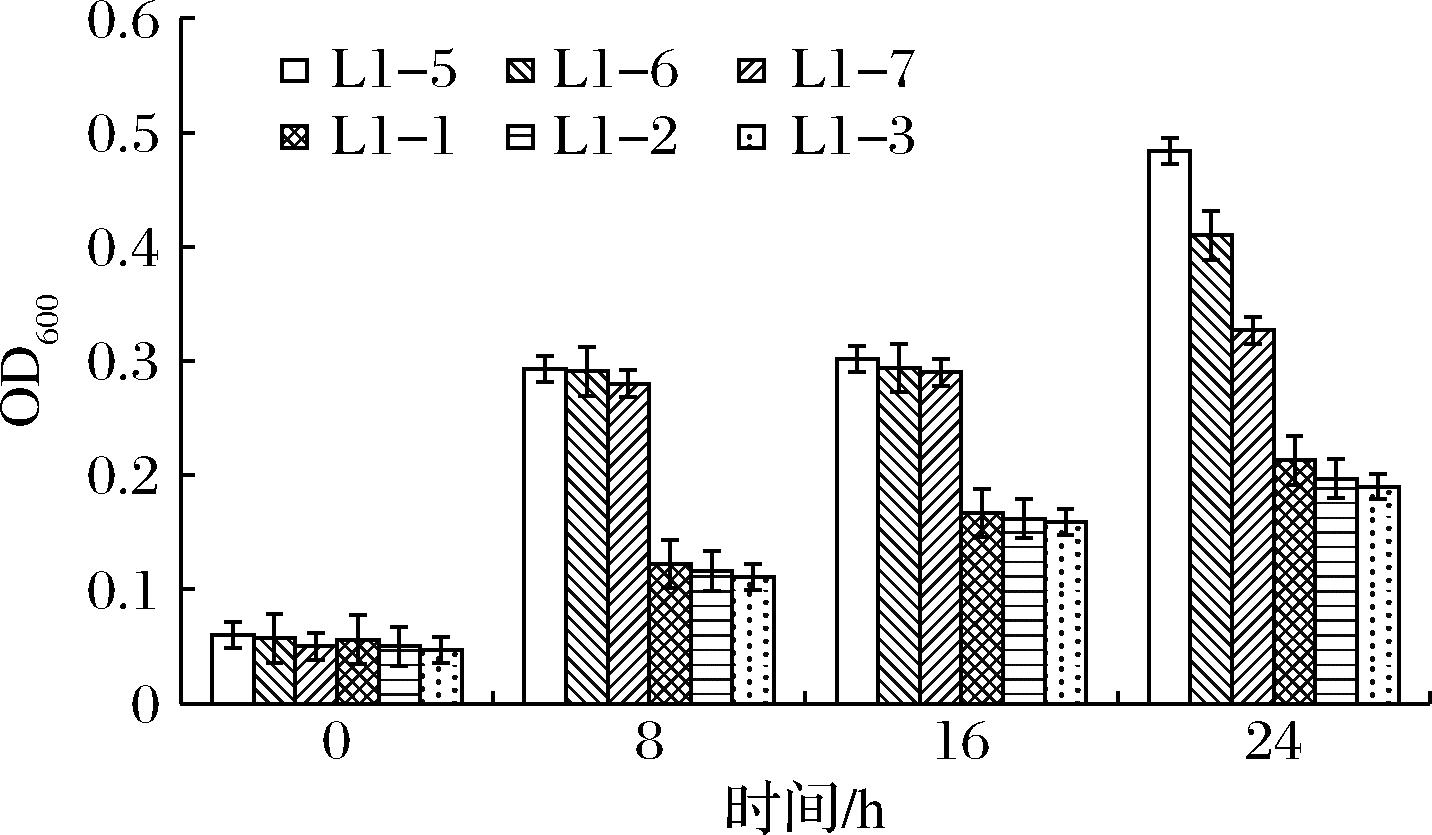
图4 各菌株在测试培养基中的生长
Fig.4 Growth of strains in the test medium
2.3 利用生物传感器筛选获得2′-FL高产菌株
2′-FL生物传感器构建成功后,对2.2.3节中2′-FL合成能力最好的菌株L1-5使用1.2.5节方法进行紫外诱变,构建突变体库进行大规模高通量筛选。将突变体库L1-5-1、L1-5-2、L1-5-3、L1-5-4、L1-5-5和L1-5-6在M9测试培养基中连续传代,并测定生长情况。如图5所示,在转接8代后,突变体库L1-5-1、L1-5-2和L1-5-3在传代过程中生长能力逐渐提高,传代8次后OD600值均稳定在1.5以上。选择生长最佳的突变体库L1-5-1涂布于M9测试培养基琼脂平板进行单克隆分离,37 ℃培养36 h后随机挑选3个大菌落命名为菌株L1-5-T1、L1-5-T2和L1-5-T3。将上述菌株中传感器质粒pTrc99a-Ptrc-manB-afcA丢失,重新导入2′-FL生产质粒pTrc99a-manB,获得菌株L1-5-T1′、L1-5-T2′和L1-5-T3′。以未经紫外诱变的菌株L1-1作为对照菌株,利用M9发酵培养基对菌株L1-5-T1′、L1-5-T2′和L1-5-T3′进行孔板发酵测试。结果发现,菌株L1-5-T1′产量最高,达到4.6 g/L,比未经紫外诱变的阳性对照菌株L1-1产量高约5倍,如图6所示。
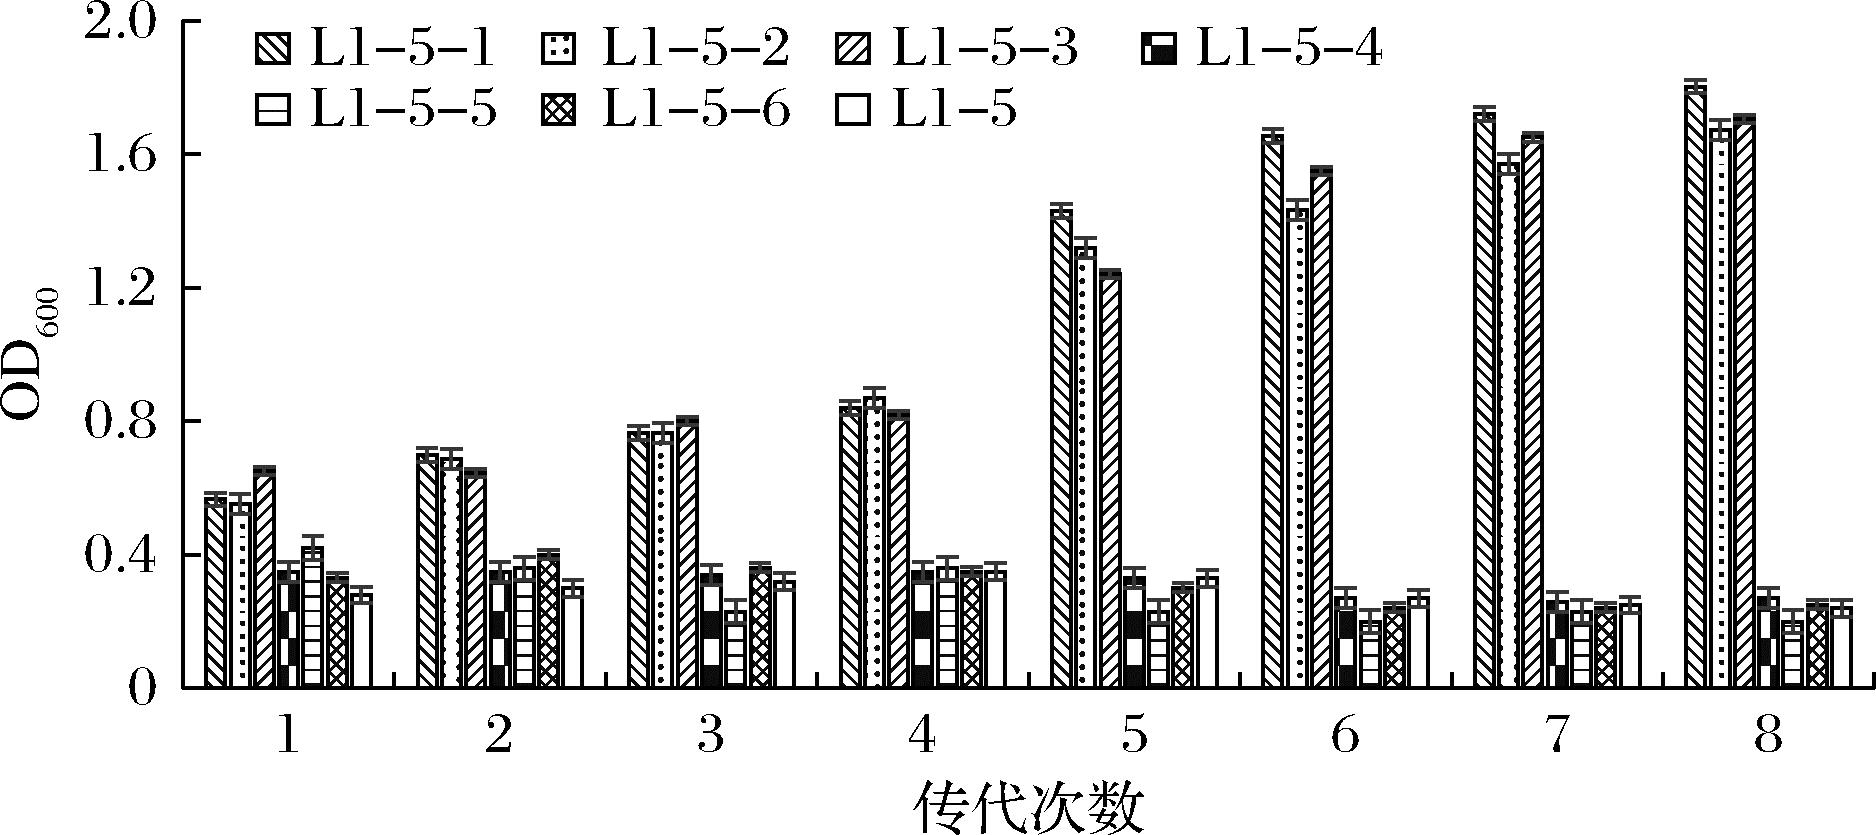
图5 传代过程中突变体库的生长测定
Fig.5 Growth of mutant libraries during transfer
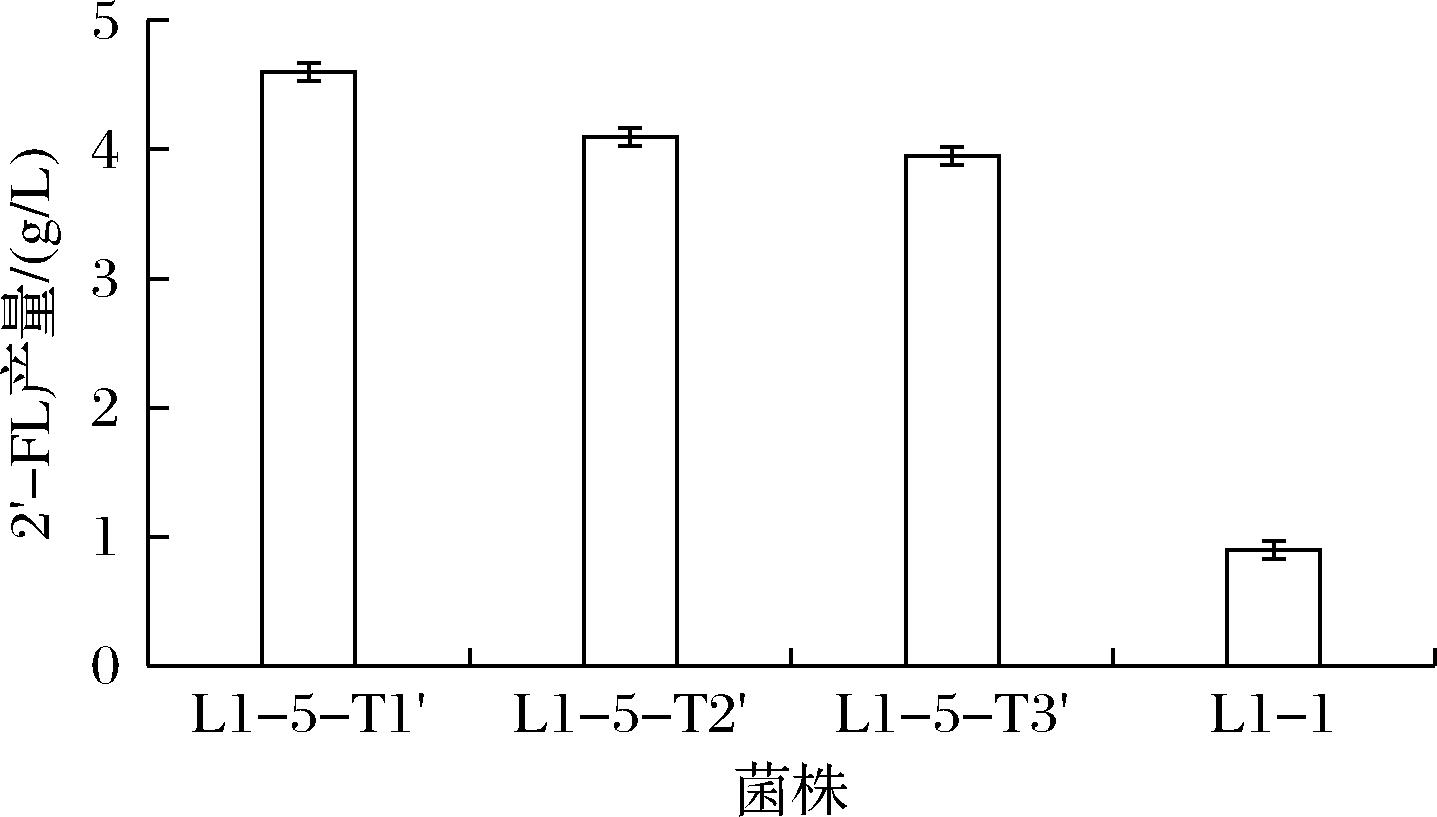
图6 快速生长菌株的2′-FL产量
Fig.6 2′-FL production in fast-growing strains
目前,通过途径关键酶的挖掘、已知合成路线的搭建和优化等菌种构建策略,2′-FL生产菌种已经达到了较高水平[7]。但2′-FL主要通过液相色谱等方法检测,逐一评价菌株的生产能力费时费力,高通量检测方法的缺失制约了高产菌株的进一步选育[22]。上述研究开发出的新型2′-FL全细胞生物传感器,打破了常规利用调控蛋白、核糖开关等效应大分子构建生物传感器的局限,基于糖类可以作为菌株生长碳源的特点,利用生长偶联的优势,开发出通过简单富集培养实现2′-FL高产菌株进化和高通量筛选的新方法,结果显示可显著提高菌种的筛选效率。
2.4 5 L发酵罐验证菌株2′-FL产量
为了评估菌株L1-5-T1′在放大培养体系下生产2′-FL的能力,在5 L生物反应器中进行分批补料发酵。使用M9发酵培养基,以甘油为生长碳源,添加30 g/L乳糖以及20 g/L甘露糖作为底物。发酵结果如图7所示,发酵0~10 h为延迟期,OD600值与2′-FL产量均维持在较低水平,而在进入指数生长期后,菌体生长速率显著提升,同时2′-FL产量随菌体生物量的累积同步快速上升,产量与菌株生长情况偶联;发酵32 h后,菌体生长进入稳定期,OD600值增长速率及对应的2′-FL合成速率逐渐放缓,推测该阶段可能伴随碳源、底物的消耗或代谢副产物的累积,导致产物合成能力减弱;最终2′-FL产量达到峰值32.19 g/L。
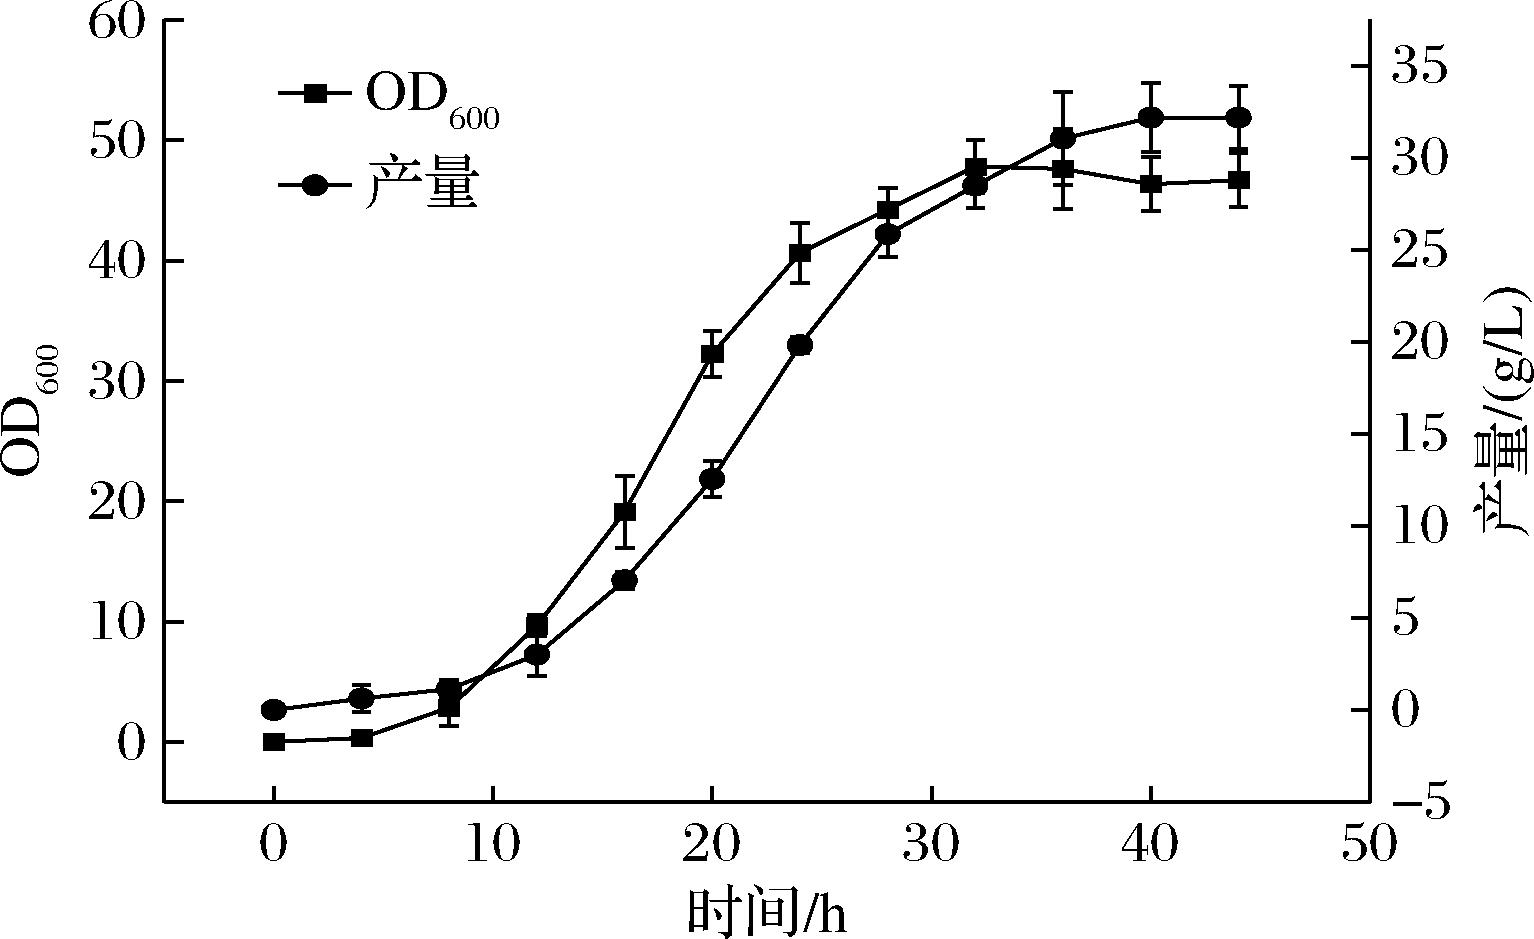
图7 菌株L1-5-T1′在5L发酵罐中的生长曲线及2′-FL的产量
Fig.7 Growth curve of strain L1-5-T1′ in a 5 L fermenter and 2′-FL yield
3 结语
本研究利用代谢工程改造和生物传感器高通量筛选获得高效合成2′-FL的E.coli菌株。首先,通过高拷贝质粒pTrc99a过表达manB,利用Biobrick系列启动子在pSB4K5中分别组合表达futC和manC,来构建并优化从头合成途径,实现2′-FL的初步合成。之后,引入外源基因afcA构建2′-FL生物传感器,实现目标产物合成和菌株生长能力相偶联。最后,利用生物传感器筛选获得菌株L1-5-T1,将其去除afcA后获得菌株L1-5-T1′,产量达到4.6 g/L,相较于对照菌株L1-1,2′-FL产量提高了5倍。最终,该菌株在5 L发酵罐中2′-FL产量达到32.19 g/L。研究证实了利用2′-FL全细胞生物传感器将产物合成与细胞生长相耦联,进化筛选获得高产菌株的高效性。在今后的研究中,可进一步对突变菌株的高产机制进行解析,为后续进行菌株改造提供理论依据。同时,还可以对进化筛选得到的工程菌株进一步优化,如通过敲除克拉酸合成途径编码基因(wcaJ)、调节NADPH再生等策略进一步提高2′-FL生产菌株的工业化生产能力[23]。
[1] 米丽娟, 闫竞宇, 郭珊珊, 等.中国母乳寡糖构成特征分析[J].食品科学, 2024, 45(4):197-206.Mi L J, Yan J Y, Guo S S, et al.Characteristics of oligosaccharide composition in Chinese human milk[J].Food Science, 2024, 45(4):197-206.
[2] Wici ski M, Sawicka E, G
 balski J, et al.Human milk oligosaccharides:Health benefits, potential applications in infant formulas, and pharmacology[J].Nutrients, 2020, 12(1):266.
[3] 邹宇欣, 张文池, 张荣珍.代谢工程法改造大肠杆菌合成2′-岩藻糖基乳糖[J].食品与生物技术学报, 2024, 43(8):68-76.Zou Y X, Zhang W C, Zhang R Z.Metabolic engineering of Escherichia coli for the synthesis of 2′-fucosyllactose synthesis[J].Journal of Food Science and Biotechnology, 2024, 43(8):68-76.
[4] 牛松峰. 代谢工程改造大肠杆菌生产2′-岩藻糖基乳糖[D].重庆:西南大学, 2020.Niu S F.Metabolic engineering of Escherichia coli for production of 2′-fucosyllactose[D].Chongqing:Southwest University, 2020.
[5] 彭麟惠, 于文文, 邓洁莹, 等.组合代谢工程策略改造大肠杆菌从头合成2′-岩藻糖基乳糖[J].食品与发酵工业, 2025, 51(24):9-17.Peng L H, Yu W W, Deng J Y, et al.De novo synthesis of 2′-fucosyllactose through combinatorial metabolic engineering strategies in Escherichia coli[J].Food and Fermentation Industries, 2025, 51(24):9-17.
[6] Becker D J,Lowe J B.Fucose:Biosynthesis and biological function in mammals[J].Glycobiology, 2003, 13(7):41R-53R.
[7] 刘琳, 赵藤, 高俊哲, 等.2′-岩藻糖基乳糖功能及其微生物生产菌种构建研究进展[J].食品研究与开发, 2024, 45(8):207-216.Liu L, Zhao T, Gao J Z, et al.Research progress on the function of 2′-fucosyllactose and the construction of microbial production strains[J].Food Research and Development, 2024, 45(8):207-216.
[8] 李娜, 宋文娇, 徐铮, 等.2′-岩藻糖基乳糖的生物制造研究进展[J].生物加工过程, 2025, 23(3):329-337;354.Li N, Song W J, Xu Z, et al.Advancements in the biomanufacturing of 2′-fucosyllactose[J].Chinese Journal of Bioprocess Engineering, 2025, 23(3):329-337;354.
[9] Engels L, Elling L.WBGL:A novel bacterial α-1,2-fucosyltransferase for the synthesis of 2′-fucosyllactose[J].Glycobiology, 2014, 24(2):170-178.
[10] 何滋, 梁山泉, 刘丹, 等.工程大肠杆菌利用甘油和乳糖高效合成2′-岩藻糖基乳糖[J].食品科学, 2024, 45(18):99-105.He Z, Liang S Q, Liu D, et al.Efficient biosynthesis of 2′-fucosyllactose using glycerol and lactose in engineered Escherichia coli[J].Food Science, 2024, 45(18):99-105.
[11] Baumgärtner F, Conrad J, Sprenger G A, et al.Synthesis of the human milk oligosaccharide lacto-N-tetraose in metabolically engineered, plasmid-free E.coli[J].ChemBioChem, 2014, 15(13):1896-1900.
[12] Baumgärtner F, Seitz L, Sprenger G A, et al.Construction of Escherichia coli strains with chromosomally integrated expression cassettes for the synthesis of 2′-fucosyllactose[J].Microbial Cell Factories, 2013, 12:40.
[13] Li Q G, Liu C, He J H, et al.Construction and application of 3-fucosyllactose whole-cell biosensor for high-throughput screening of overproducers[J].Bioresource Technology, 2024, 402:130798.
[14] 李莎, 胡雅雯, 李俊众, 等.大肠杆菌利用甘露糖生产2′-岩藻糖基乳糖的途径构建及优化[J].天津科技大学学报, 2025, 40(6):29-36;75.Li S, Hu Y W, Li J Z, et al.Construction and optimization of the pathway from mannose to 2′-fucosyllactose in Escherichia coli[J].Journal of Tianjin University of Science and Technology, 2025, 40(6):29-36;75.
[15] Li J Z, He T Y, Ren S D, et al.Construction and optimization of a BgaR-based lactose biosensor for high-throughput selection of human milk oligosaccharide producers[J].Journal of Agricultural and Food Chemistry, 2025, 73(27):17138-17146.
[16] Sun X, Li Q G, Wang Y, et al.Isoleucyl-tRNA synthetase mutant based whole-cell biosensor for high-throughput selection of isoleucine overproducers[J].Biosensors and Bioelectronics, 2021, 172:112783.
[17] 李珍珍, 孙桂莲, 栾庆民, 等.2′-岩藻糖基乳糖功能及制备研究进展[J].精细与专用化学品, 2023, 31(9):1-8;13.Li Z Z, Sun G L, Luan Q M, et al.Research progress in the function and preparation of 2′-fucosyllactose[J].Fine and Specialty Chemicals, 2023, 31(9):1-8;13.
[18] 周宏霞, 王楠, 都颖, 等.柱前衍生法测定岩藻多糖中的岩藻糖含量[J].农产品加工, 2022(23):46-48.Zhou H X, Wang N, Du Y, et al.Determination of L-fucose in fucoidan by pre-column derivatization[J].Farm Products Processing, 2022(23):46-48.
[19] 张志国, 生庆海, 卢彦君.HPLC法检测低聚果糖的研究[J].食品科学, 2002, 23(8):221-223.Zhang Z G, Sheng Q H, Lu Y J.Study on the detection of oligofructose by HPLC[J].Food Science, 2002, 23(8):221-223.
[20] 丁照云, 郭超, 刘艳,等.运用BioBrick组装策略共表达CYP108 N7及其氧化还原伴侣[J].应用与环境生物学报, 2021, 27(2):466-471.Ding Z Y, Guo C, Liu Y, et al.Coexpression of CYP108 N7 and its redox partner facilitated by BioBrick assembly[J].Chinese Journal of Applied and Environmental Biology, 2021, 27(2):466-471.
[21] 许晓林, 王斯栌, 陈菲, 等.利用2′-岩藻糖基乳糖生长的两歧双歧杆菌BD-1免疫调节功能评价[J].中国微生态学杂志, 2024, 36(7):745-752;760.Xu X L, Wang S L, Chen F, et al.Evaluation of the immunomodulatory function of Bifidobacterium bifidum BD-1 grown with 2′-fucosyllactose[J].Chinese Journal of Microecology, 2024, 36(7):745-752;760.
[22] Wang L Y, Zhang K, Gao S Q, et al.High-yield synthesis of 2′-fucosyllactose from glycerol and glucose in engineered Escherichia coli[J].Journal of Agricultural and Food Chemistry, 2023, 71(41):15237-15248.
[23] 蔡旭东. 2′-岩藻糖基乳糖从头合成途径在重组大肠杆菌中的构建及代谢优化[D].武汉:华中科技大学, 2024.Cai X D.Construction and metabolic optimization of the de novo pathway of 2′-fucosyllactose in recombinant Escherichia coli[D].Wuhan:Huazhong University of Science and Technology, 2024.