酵素(Jiaosu)产品起源于传统发酵食品,传统上被理解为含有活性酶成分的物质,广义上则指通过微生物发酵基料产生的次级代谢产物[1]。2018年,中国生物发酵产业协会发布了QB/T 5323—2018《植物酵素》,对酵素产品进行了科学定义:酵素是以动物、植物、菌类为主要原料,添加或不添加辅料,通过微生物发酵制得的含有特定生物活性成分和功能的产品。
随着国民健康意识普遍增强,植物源酵素因其原料来源广泛、潜在健康益处多样而成为研究热点。然而,当前主流研究多集中于新鲜果蔬,而对更具资源与功能优势的“药食同源”植物加工副产物关注不足。罗汉果(Siraitia grosvenorii)是我国特色的药食同源植物,其果实中富含的罗汉果甜苷作为一类天然高倍甜味剂,在食品和医药工业中具有重要应用价值[2]。然而,在甜苷提取过程中会产生高达60%~70%的固体残渣,其主要成分为纤维素、半纤维素和果胶等[3]。目前,这些残渣大多被直接废弃或作为低价值饲料处理,不仅造成了资源的极大浪费,也带来了很大的环境压力。研究表明罗汉果渣中通常还会保留一定量的多酚、黄酮等天然活性物质[4]。因此,如何实现罗汉果渣的高值化利用成为罗汉果产业可持续发展亟待解决的关键问题之一。
在传统酵素的制备中,多采用单一菌种,发酵效果无法保证。相较于单菌发酵,混菌发酵具有许多优点,不同菌种之间会产生协同增效作用,代谢机制更加复杂,发酵产物更加丰富[5]。其中,酵母菌和乳酸菌协同发酵被广泛用于多种发酵生产实践中,体系中的微生物具有互作机制,因此可以有效提升发酵效果,进而提升酵素产品的活性和功能[6]。两者之间的协同发酵,主要是乳酸菌代谢产生丙酮酸、二羧酸、氨基酸和脂肪酸等代谢产物促进了酵母菌生长,同时乳酸菌还会促进发酵底物中其他蛋白质类物质的水解[7]。
基于此,本研究首先从多种食源性发酵物中分离、筛选并鉴定适用于酵素发酵的酵母菌。在此基础上,以罗汉果渣为原料,采用酵母菌与乳酸菌进行复合发酵,并系统优化碳源、酶解及发酵等关键工艺参数,建立稳定的发酵工艺。最终,通过评价发酵产物对ABTS阳离子自由基、DPPH自由基及羟自由基(·OH)的清除能力,科学评估其抗氧化性能的提升效果。本研究不仅为罗汉果渣的高值化利用提供了新思路,也为开发基于农业副产物的新型功能性酵素产品提供了实践范例。
1 材料与方法
1.1 材料与试剂
蛋白胨、牛肉粉、葡萄糖、酵母粉、乙酸钠、K2HPO4、MgSO4、柠檬酸三铵、MnSO4、吐温80、琼脂粉、胆盐、NaCl、酵母膏、胰蛋白胨、DPPH、ABTS、FeSO4、水杨酸、H2O2、NaOH、AlCl3、NaNO2、芦丁、没食子酸、维生素C、福林酚,北京市金利斯科技有限公司。以上试剂,如无特殊说明均为国产分析纯。
酿酒酵母菌(Saccharomyces cerevisiae)SDM1和植物乳植杆菌(Lactiplantibacillus plantarum)JYLP002,保存在北京工商大学食品与健康学院食品轻工大楼天然产物资源发掘实验室。
1.2 仪器与设备
ME104分析天平,北京中恒日鑫科技有限公司;FE28-Micro型pH计,梅特勒-托利多仪器(上海)有限公司;VD-1320洁净工作台,苏净集团苏州安泰空气技术有限公司;YXQ-100A立式压力蒸汽灭菌锅,上海博迅实业有限公司医疗设备厂;GRX-9013A电热恒温培养箱,上海一恒科学仪器有限公司;DK-98-IIA恒温水浴锅,天津市泰斯特仪器有限公司;JDHZ-12A组合式振荡培养箱,常州金坛精达仪器制造有限公司;GL-20G-II台式微量冷冻离心机,贝克曼库尔特国际贸易(上海)有限公司;Multiskan SkyHigh全波长酶标仪,赛默飞世尔科技公司。
1.3 实验方法
1.3.1 酵母菌筛选
1.3.1.1 酵母菌发酵能力的测定
以实验室前期从全国多地食物源发酵物中分离的18株酵母菌为研究对象,采用杜氏管发酵法,将酵母菌以2%的接种量接入装有杜氏小管的灭菌YPD液体培养基中,于28 ℃静置培养,以杜氏小管内产气量作为评价指标,筛选出发酵能力较强的酵母菌株[8]。
1.3.1.2 酵母菌pH耐受能力的测定
将菌液活化后以2%的接种量接种于不同pH值(2.5、2.8、3.0、3.5、4.0、4.5)的YPD液体培养基中,置于28 ℃下恒温培养24 h后,测定吸光值(OD600 nm),并以pH为横坐标、OD600 nm为纵坐标绘制菌株的生长曲线[9]。
1.3.1.3 酵母菌高糖耐受能力的测定
将菌液活化后以2%的接种量接种于不同葡萄糖质量浓度(200、300、400、500、600 g/L)的YPD液体培养基中,置于28 ℃下恒温培养24 h后,测定吸光值(OD600 nm),并以葡萄糖浓度为横坐标、OD600 nm为纵坐标绘制菌株的生长曲线[10]。
1.3.1.4 酵母菌产酒精能力的测定
采用2,3,5-氯化三苯基四氮唑(2,3,5-triphenyl tetrazolium chloride,TTC)法对酵母菌的产乙醇能力进行评估[11]。将菌株接种到TTC固体培养基上,在28 ℃恒温培养箱中静置培养48 h后,观察并统计菌落颜色。
1.3.1.5 酵母菌产酯能力的测定
采用三丁酸甘油酯琼脂平板透明法[12]。将菌株接种到三丁酸甘油酯的固体酵母浸出粉胨葡萄糖琼脂(YEPD)培养基上,在28 ℃恒温培养箱中静置培养48 h后观察,若出现透明水圈,则说明酵母产酯,根据透明圈大小判断酵母菌产酯能力。
1.3.2 酵母菌的分子生物学鉴定
1.3.2.1 酵母菌DNA的提取
取酵母菌液1.0 mL,10 000 r/min离心5 min,去上清液,用50 μL Tris-EDTA(TE)缓冲液重悬沉淀,涡旋均匀,沸水煮20 min,10 000 r/min离心3 min。
1.3.2.2 酵母菌的分子鉴定
使用正向引物ITS1(5′-TCCGTAGGTGAACCTGCGG-3′)和反向引物ITS4(5′-TCCTCCGCTTATTGATATGC-3′)扩增基因序列。
PCR扩增程序:首先95 ℃预变性3 min,然后95 ℃变性15 s,接着50 ℃退火15 s,72 ℃延伸2 min,共35个循环,最后72 ℃延伸5 min。
测序及分析:扩增后的DNA产物送往北京六合华大基因科技有限公司进行测序。然后将测序结果提交到GenBank中进行分析比对,选取同源性高的序列,利用SeqMan和MEGA 7.0软件构建系统发育树。
1.3.3 罗汉果渣酵素的制备
罗汉果渣→酶解→灭活灭菌→接种发酵
为实现对罗汉果甜苷提取副产物的高值化利用,参照工业提取工艺制备模拟果渣原料。具体流程如下:将干燥罗汉果果实破碎后,按料液比1∶10(g∶mL)加入去离子水,于85 ℃恒温水浴中提取30 min,模拟实际生产中的甜苷浸出过程。提取结束后,将混合物用100目筛网过滤,留果渣备用。将罗汉果渣与水按料液比10(g∶mL)混合,随后进行复合酶解:添加纤维素酶1%(质量分数)、半纤维素酶2%(质量分数)和果胶酶1.5%(质量分数),于45 ℃水浴中酶解80 min。酶解完成后,将酶解液于100 ℃进行巴氏灭菌20 min,随后冷却至室温。将活化后的酵母菌SDM1和乳酸菌JYLP002菌液用无菌水调整至1×10⁷ CFU/mL,均以2%接种量同时接入罗汉果渣酶解液,并置于振荡培养箱内动态发酵。
1.3.4 碳源种类对抗氧化活性的影响
按照1.3.3节方法,保持其他条件不变,仅改变初始培养基中碳源种类,考察不同碳源种类(木糖、果糖、葡萄糖、蔗糖、乳糖、麦芽糖)对于菌株发酵抗氧化能力的影响,同时设置无碳源添加的对照组,从而筛选出最适宜的碳源种类。
1.3.5 碳源浓度对抗氧化活性的影响
按照1.3.3节方法,保持其他条件不变,仅改变初始培养基中碳源浓度,考察不同碳源质量浓度(0、10、20、30、40、50、60、70、80 g/L)对于菌株发酵抗氧化能力的影响,从而筛选出最适宜的碳源浓度。
1.3.6 发酵工艺优化
1.3.6.1 单因素试验
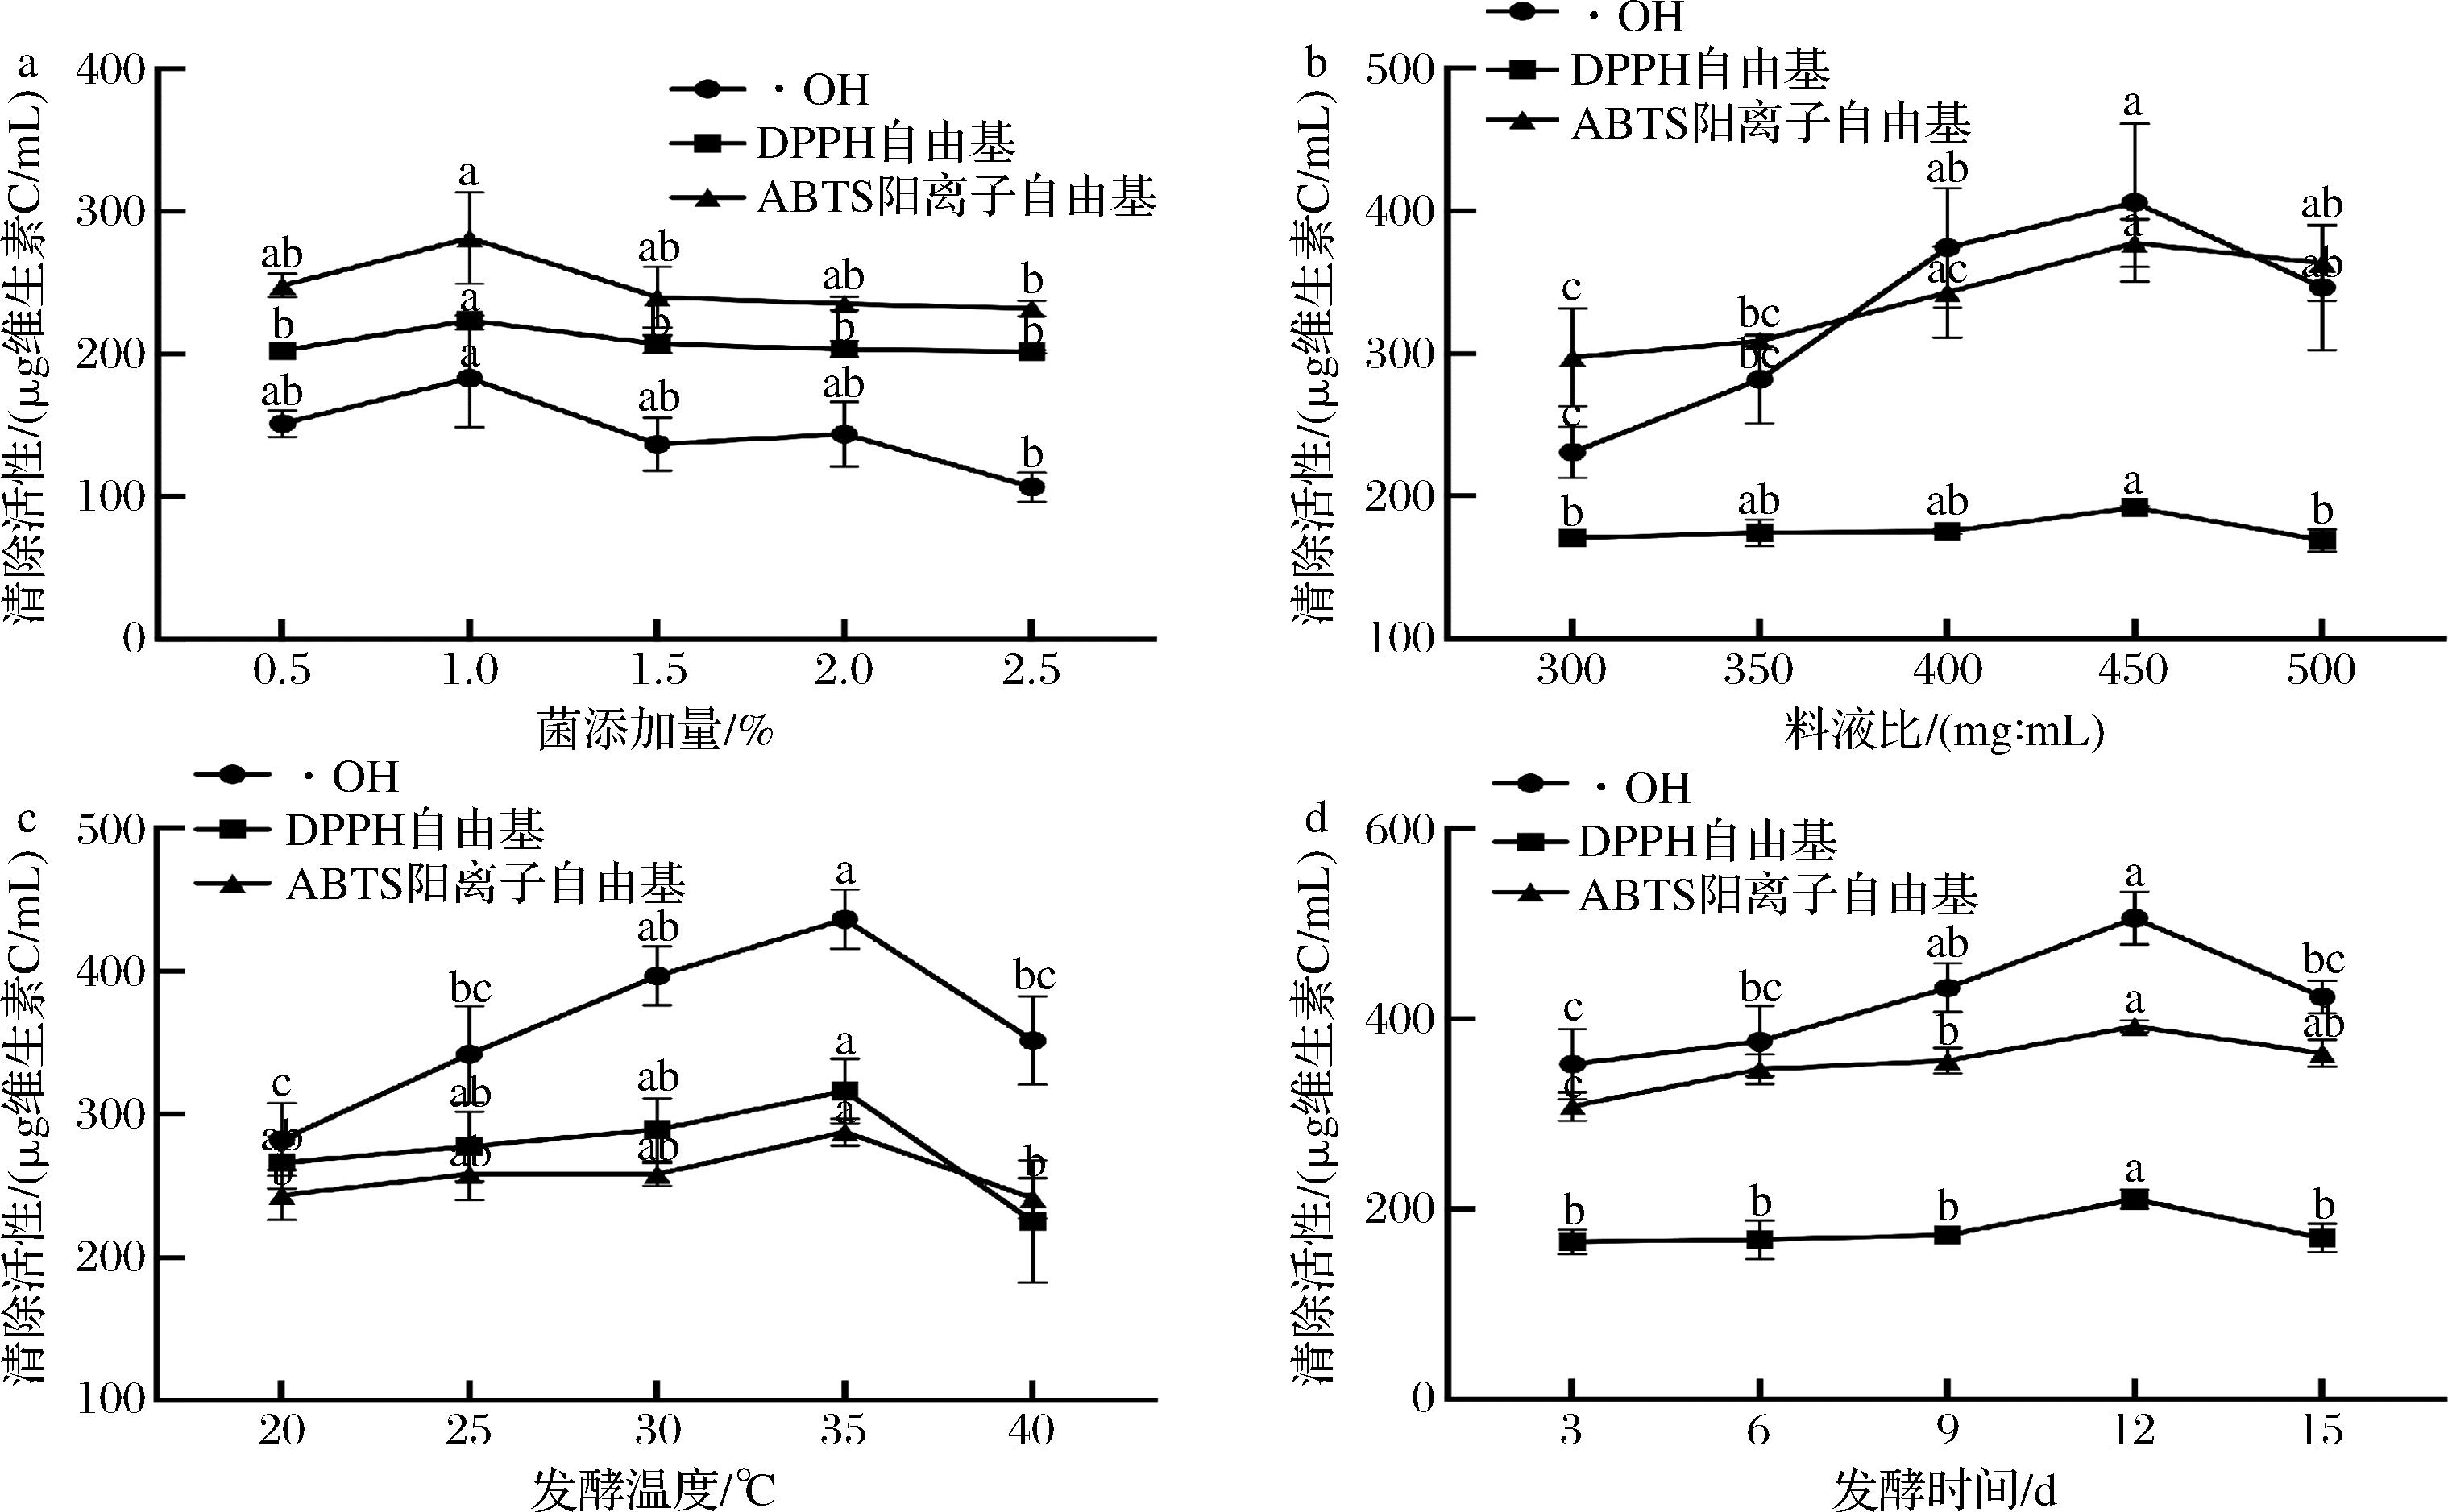
按照1.3.3节方法,保持其他条件不变,分别考察不同菌添加量(0.5%、1.0%、1.5%、2.0%、2.5%)、料液比[300、350、400、450、500(mg∶mL)]、发酵温度(20、25、30、35、40 ℃)和发酵时间(3、6、9、12、15 d)对于发酵产物抗氧化能力的影响。
1.3.6.2 响应面试验
在单因素试验基础上,选择料液比(A)、菌种添加量(B)、发酵温度(C)和发酵时间(D)进行四因素三水平Box-Behnken响应面法设计试验,以·OH清除活性作为评价指标。依据试验结果对数据进行回归拟合,并对所建立的模型进行显著性检验和方差分析。响应面试验的设计见表1。
表1 响应面因素水平表
Table 1 Factors and levels in response surface methodology
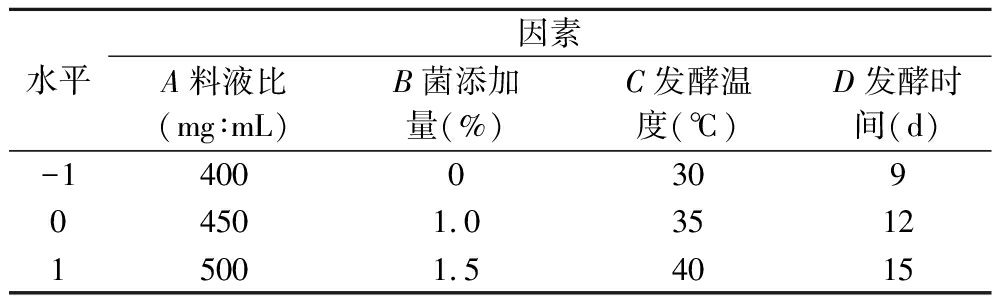
水平因素A料液比(mg∶mL)B菌添加量(%)C发酵温度(℃)D发酵时间(d)-1400030904501.0351215001.54015
1.3.7 罗汉果渣酵素抗氧化能力测定
1.3.7.1 DPPH自由基清除能力
参考Liu等[13]方法并略作修改。以95%(体积分数)乙醇溶液为溶剂配制0.1 mmol/L的DPPH溶液,分别设置试验组(50 μL样品 + 150 μL DPPH溶液)、对照组(50 μL水 + 150 μL DPPH溶液)及空白组(50 μL样品 + 150 μL无水乙醇);各组振荡混匀后避光反应30 min,测定517 nm处吸光度,并通过公式(1)计算DPPH自由基清除率,其中空白组用于消除样品本身及乙醇可能带来的背景干扰。
DPPH自由基清除率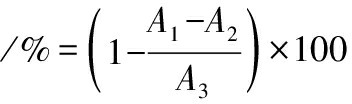
(1)
式中:A1,试验组混合溶液的吸光度;A2,空白组混合溶液的吸光度;A3,对照组混合溶液的吸光度。
1.3.7.2 ·OH清除能力
参考Huang等[14]方法并略作修改。首先配制9 mmol/L的水杨酸、9 mmol/L的FeSO4和8.8 mmol/L 的H2O2溶液。分别设置试验组(10 μL样品+40 μL水杨酸+40 μL FeSO4+40 μL H2O2+30 μL水)、对照组(以等体积蒸馏水代替样品溶液)、空白组(以等体积蒸馏水代替样品溶液和H2O2);各组振荡混匀后于37 ℃培养箱中反应30 min,测定510 nm处吸光度,并通过公式(2)计算·OH清除率,其中空白组用于消除样品本身可能带来的背景干扰。
·OH清除率
(2)
式中:A1,试验组混合溶液的吸光度;A2,空白组混合溶液的吸光度;A3,对照组混合溶液的吸光度。
1.3.7.3 ABTS阳离子自由基清除能力
参考Zhong等[15]的方法并略作修改。将0.2 mL ABTS溶液与0.2 mL K2S2O8溶液混合,于室温暗处静置12 h,然后用95%(体积分数)乙醇稀释40~50倍,制成ABTS工作液。取20 μL待测样品与200 μL ABTS工作液混合作为试验组,另取20 μL蒸馏水与200 μL ABTS工作液混合作为空白组。各组振荡混匀后,避光反应5 min,于734 nm波长下测定吸光度,并按公式(3)计算ABTS阳离子自由基清除率。
ABTS阳离子自由基清除率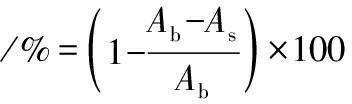
(3)
式中:Ab,试验组混合溶液的吸光度;As,空白组混合溶液的吸光度。
1.3.8 总酚含量的测定
参考Rinaldo等[16]的方法并略作修改。称取没食子酸标准品10 mg,用无水乙醇溶解并定容至100 mL,得到质量浓度为100 μg/mL的芦丁标准储备液。将储备液稀释为0~100 μg/mL的系列标准溶液,取20 μL各浓度标准溶液加入酶标板孔中。依次加入30 μL福林酚试剂和60 μL 12%(质量分数)Na2CO3溶液,再用去离子水补足反应体系至200 μL。室温避光静置2 h后,于765 nm波长下测定吸光度,绘制标准曲线。样品测定时,取20 μL待测液按相同步骤操作,加入福林酚试剂和Na2CO3溶液,定容至200 μL,避光反应2 h后测定765 nm处吸光度,并依据标准曲线计算含量。
1.3.9 总黄酮含量的测定
参考Xu等[17]的方法并略作修改。称取芦丁标准品10 mg,用无水乙醇溶解并定容至100 mL,得到质量浓度为100 μg/mL的芦丁标准储备液。将储备液稀释为0~100 μg/mL的系列标准溶液,取20 μL各浓度标准溶液加入酶标板孔中。依次加入10 μL 5%(质量分数)NaNO2溶液和60 μL去离子水,混匀后静置6 min;再加入20 μL 10%(质量分数)AlCl3溶液,混匀后静置6 min;最后加入40 μL 2 mol/L NaOH溶液,混匀并静置15 min。于510 nm波长处测定吸光度,绘制标准曲线。样品测定时,取20 μL待测液,按上述相同步骤操作,测定510 nm处的吸光度值,并根据标准曲线计算结果。
1.4 数据分析
所有实验均重复3次,数据以“平均值±标准差”形式呈现。数据处理及单因素方差分析(P<0.05)采用Excel 2019和SPSS Statistics 26.0完成;图形绘制使用Prism 10.0软件;Box-Behnken响应面试验的结果分析通过Design-Expert 12.0进行。
2 结果与分析
2.1 酵母菌筛选
2.1.1 酵母菌发酵能力
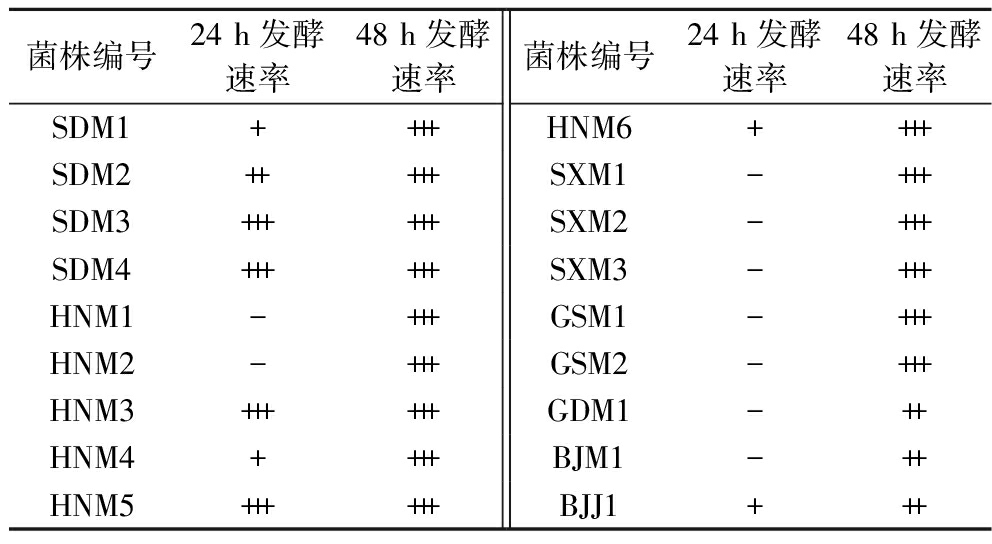
采用杜氏小管发酵法对实验室前期从全国各地食物源发酵物中分离获得的18株酵母菌进行产气能力评价,具体结果列于表2。菌株SDM3、SDM4、HNM3和HNM5在24 h表现出最高发酵速率(+++)并维持至48 h;菌株SDM2在24 h为中等速率(++),48 h提升至最高水平,呈现良好的发酵加速潜力;SDM1、HNM4和HNM6在24 h呈基础活性(+),至48 h均达到最高速率,表现出稳健的后期发酵特性。最终,筛选出SDM1、SDM2、SDM3、SDM4、HNM3、HNM4、HNM5和HNM6八株菌作为优选菌株。该筛选结果确保了菌株在发酵效率与过程稳定性方面的综合优势,为后续工艺优化奠定了菌种基础。
表2 筛选酵母菌杜氏小管产气情况
Table 2 Gas production of screened yeasts in dittmar tubes
菌株编号24 h发酵速率48 h发酵速率菌株编号24 h发酵速率48 h发酵速率SDM1++++HNM6++++SDM2+++++SXM1-+++SDM3++++++SXM2-+++SDM4++++++SXM3-+++HNM1-+++GSM1-+++HNM2-+++GSM2-+++HNM3++++++GDM1-++HNM4++++BJM1-++HNM5++++++BJJ1+++
注:“+、++、+++”分别表示产气达到杜氏小管体积的1/3、2/3、全部,“-”表示不产气。
2.1.2 酵母菌耐受能力
pH是影响微生物生长代谢的关键环境因子,直接影响微生物的生物活性、营养物质的吸收利用、代谢产物的生成及其稳定性[18]。当pH值降为2.5时,菌株SDM1表现出显著的耐酸性,其OD600 nm值仍维持在2.0以上,生长情况显著优于其他菌株(P<0.05)。该菌株在低pH环境下仍能维持旺盛生长的生理特性,与文献[19]中报道的耐酸酵母的典型特征高度一致。该特性使其在混合菌种发酵体系中能与乳酸菌形成稳定共生关系,有效避免因乳酸积累导致的pH下降对发酵过程的不利影响,在酵素等酸性发酵食品开发中具有重要应用价值[20]。葡萄糖作为酵母发酵的主要碳源,其含量直接影响菌体的生长繁殖与代谢活性。然而,高浓度葡萄糖所形成的高渗透压环境会抑制酵母的细胞活性与增殖过程[21]。随着葡萄糖质量浓度的提升,不同酵母菌株的生长情况呈现明显差异。高糖环境对所有菌株的生长均表现出抑制作用,但抑制程度存在差异。其中,菌株SDM1和HNM6表现出与文献[22]报道相当的高糖耐受性,该特性归因于其稳定的细胞膜与高效的渗透调节机制。因此,菌株SDM1既具备优异的耐酸性能,同时又具备良好的高糖耐受性(图1),可将其作为核心发酵菌株备选。
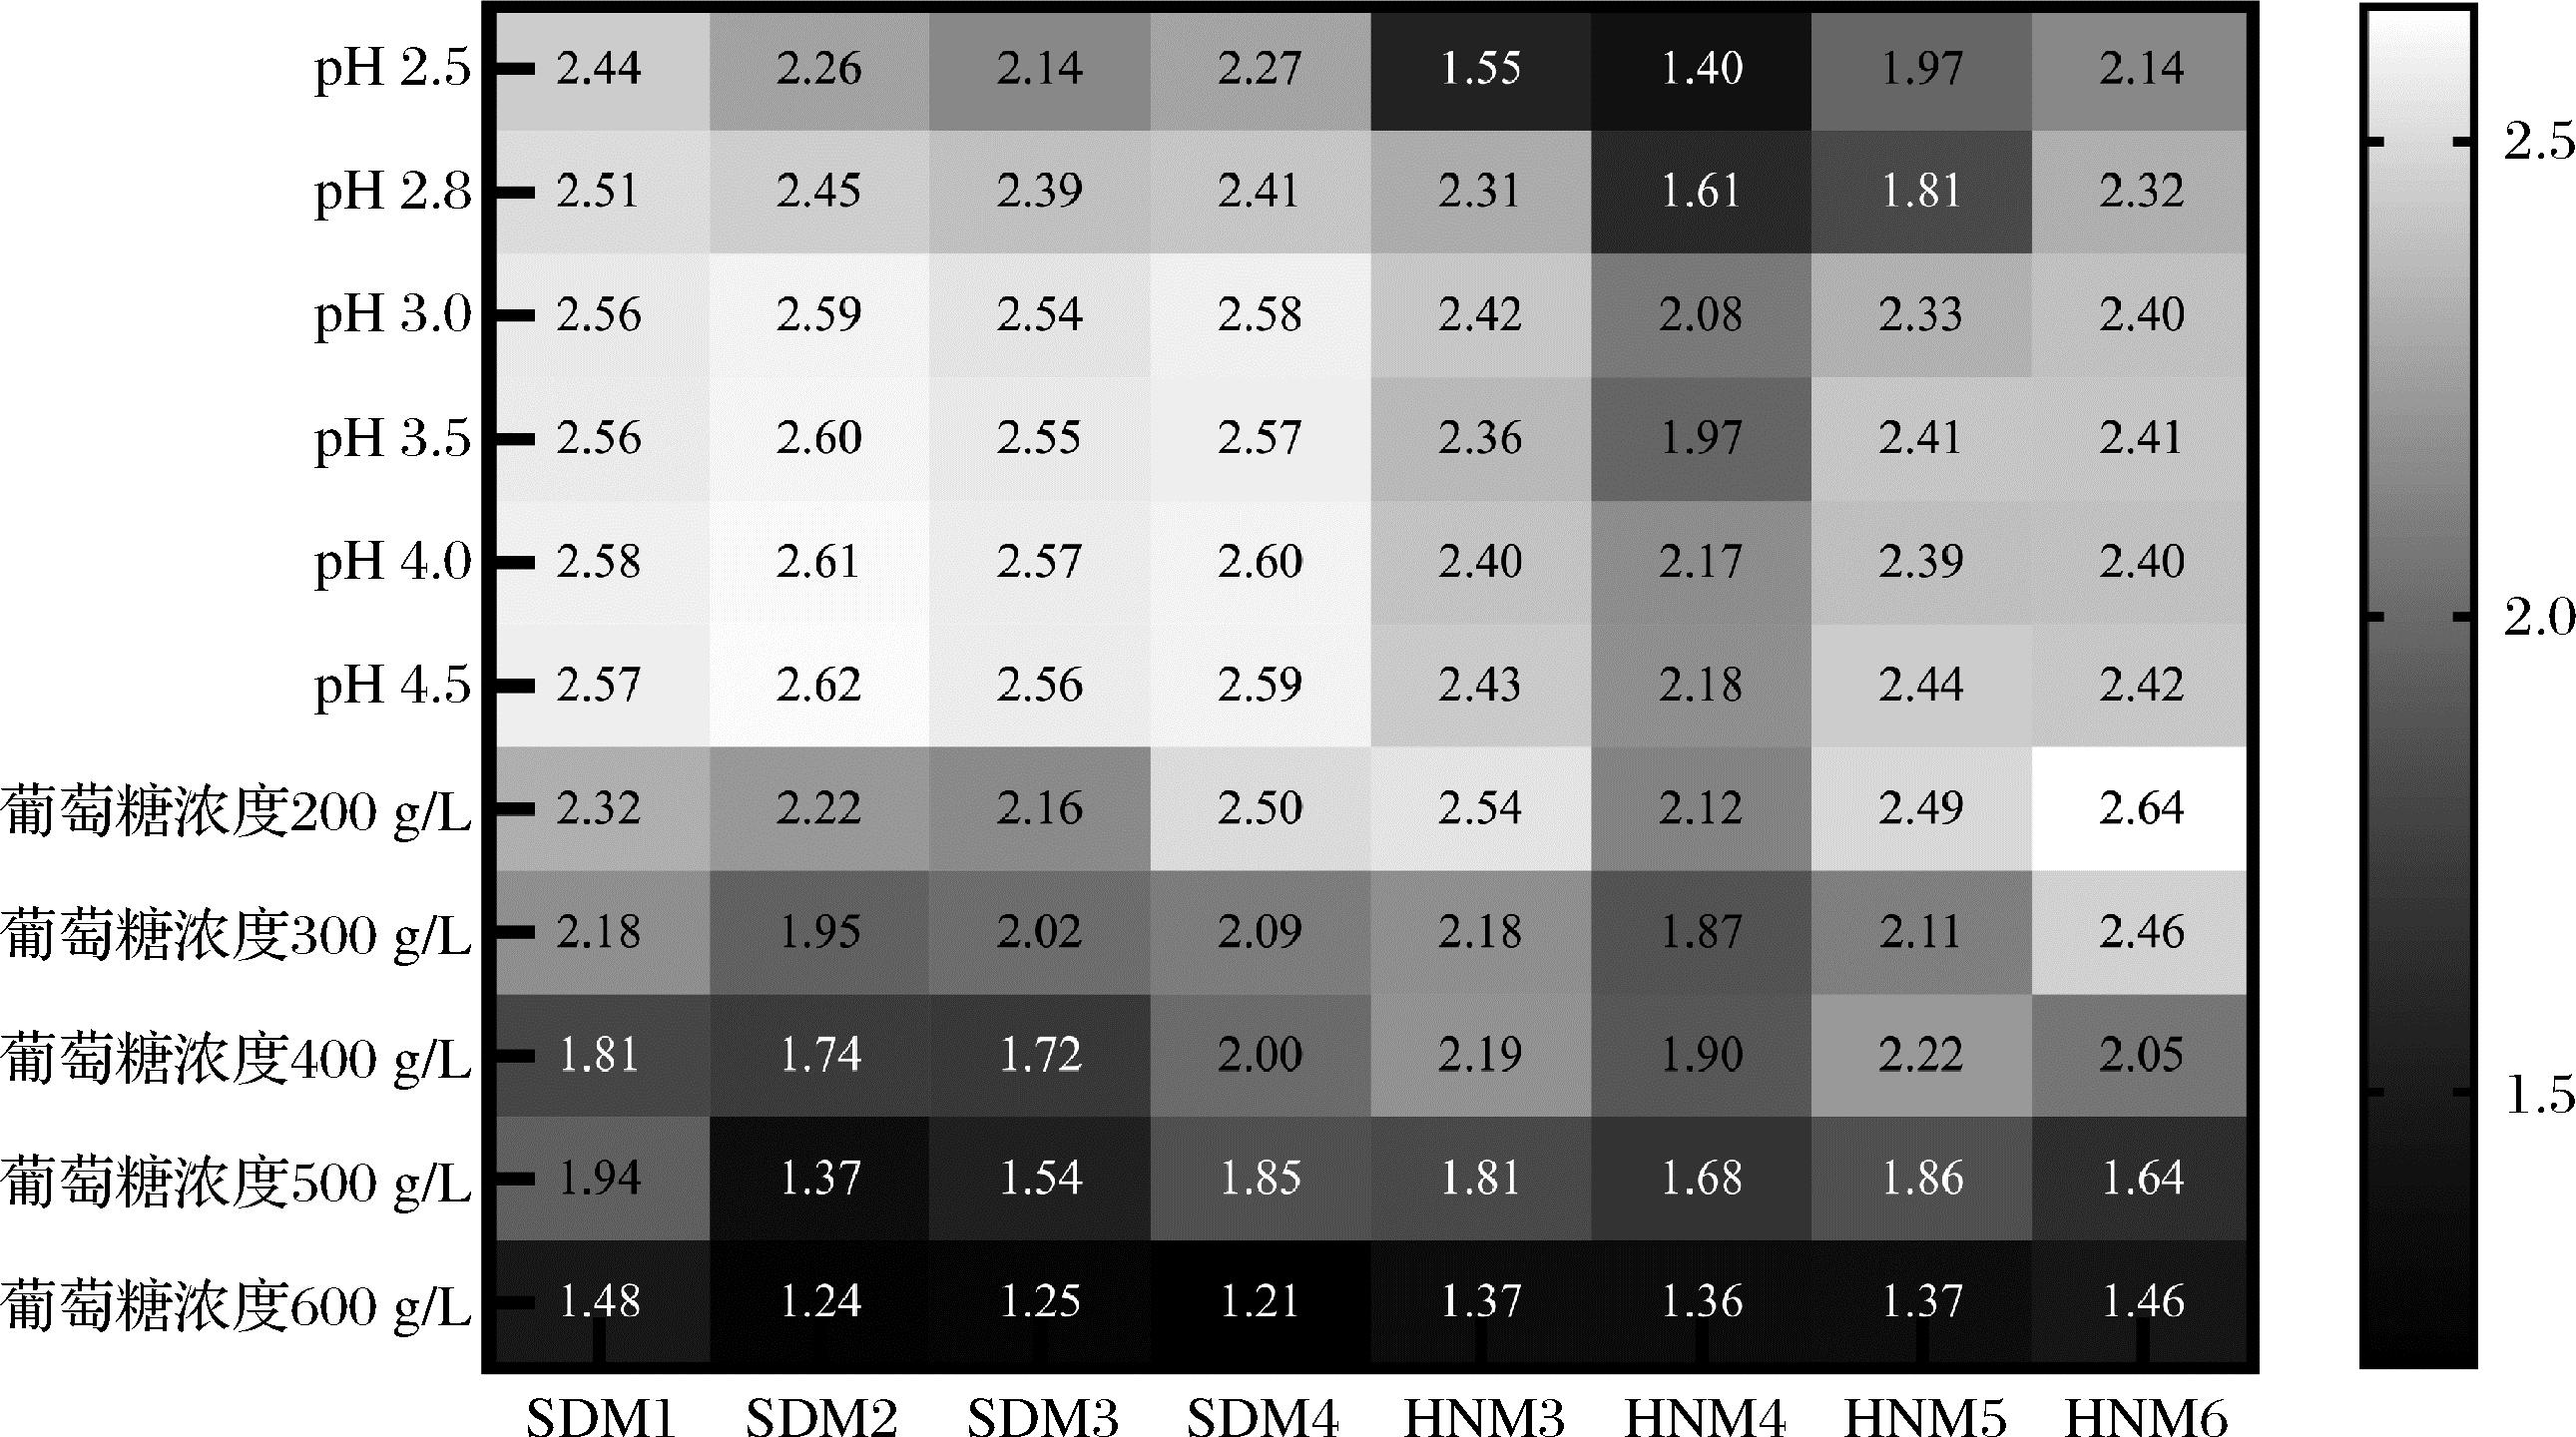
图1 酵母菌对pH值和高糖耐受性结果
Fig.1 Tolerance of yeast to pH and high sugar concentration
2.1.3 酵母菌产酒精能力
在酵素制备工艺中,乙醇含量是影响产品品质与合规性的关键因素。过高的乙醇含量不仅会引入不良风味,降低产品接受度,更可能因酒精积累触发食品安全标准限制,影响产品的市场准入与法规符合性[23]。因此,筛选低产乙醇菌株成为菌种筛选过程中的重要指标。TTC是一种显色剂,酵母菌的产物发生颜色变化,根据颜色的深浅,可以对酵母菌产酒精能力进行分析筛选[22]。酵母菌产酒精能力由弱到强,菌落颜色变化为淡粉色、玫红色和深红色。观察结果见图2(不同颜色产酒精特性的代表菌株)。
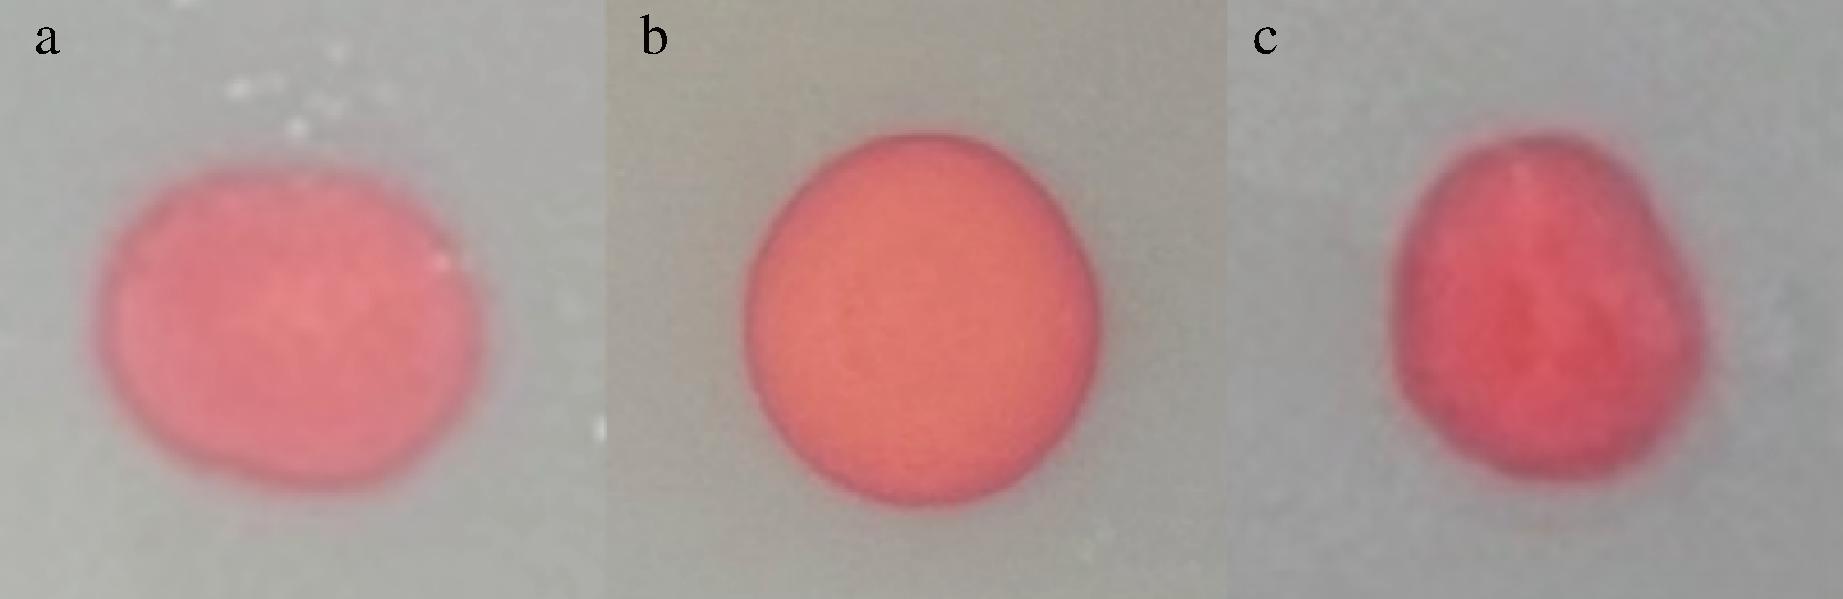
图2 酵母菌产酒精能力测定结果
Fig.2 Alcohol production capacity of yeast
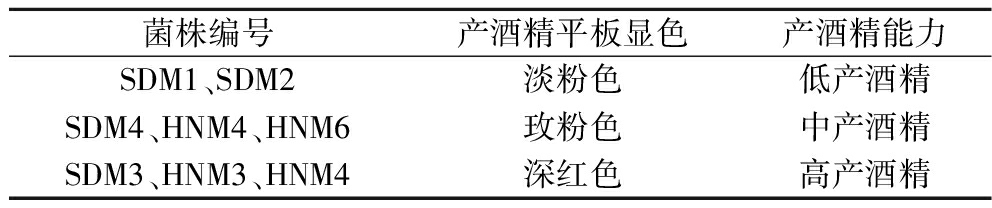
通过TTC筛选,记录各菌株菌落颜色,由表3可知,菌株SDM1、SDM2在TTC培养基上菌落呈淡粉色,为低产乙醇酵母;菌株SDM4、HNM5、HNM6在TTC培养基上菌落呈玫红色,为中产乙醇酵母;菌株SDM3、HNM3、HNM4在TTC培养基上菌落呈深红色,为高产乙醇酵母。因此,菌株SDM1为低产乙醇菌株,有利于保证产品安全性和适口性,可将其作为核心发酵菌株备选。
表3 酵母菌产酒精能力的测定结果
Table 3 Alcohol production capacity of yeast
菌株编号产酒精平板显色产酒精能力SDM1、SDM2淡粉色低产酒精SDM4、HNM4、HNM6玫粉色中产酒精SDM3、HNM3、HNM4深红色高产酒精
2.1.4 酵母菌产酯能力
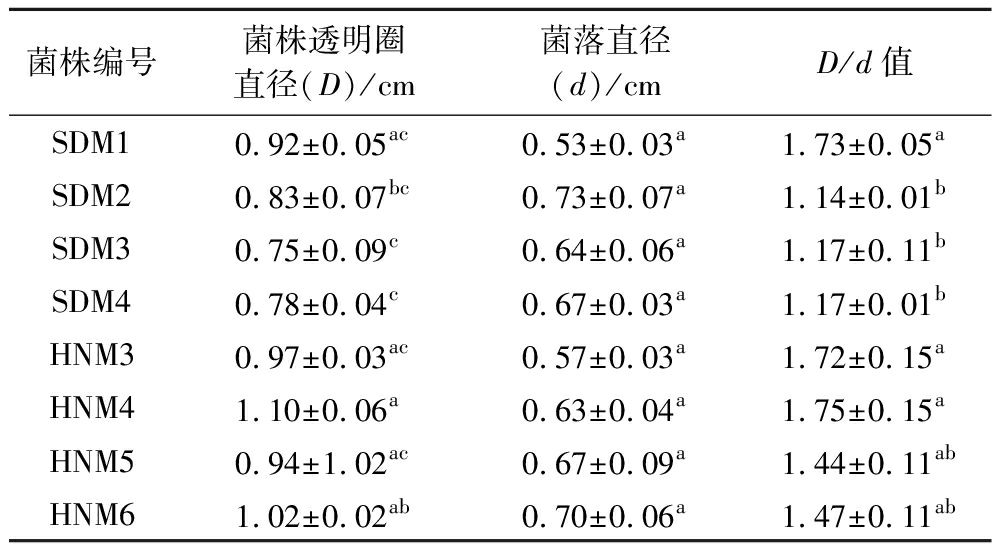
酵母菌产生的酯酶能够分解三丁酸甘油酯,从而在固体培养基的菌落周围形成透明水解圈。透明圈直径与菌落直径的比值大小与酯酶活性呈正相关,可作为酶活性的初步评价指标[22]。产酯能力是衡量酵素产品风味品质与功能价值的关键指标,产酯能力越强,产品通常风味更佳、品质更优。由表4可知,8株酵母菌均具备一定的酯类合成能力(D/d>1),为酵素产品增添了风味潜力。其中,菌株HNM4的D/d值最高(1.75±0.15),但与SDM1(1.73±0.05)和HNM3(1.72±0.15)无显著差异(P>0.05),且三者均显著高于SDM2等菌株(P<0.05)。结合前述耐酸、耐高糖及低产乙醇等关键性状,菌株SDM1在满足优良产酯能力(D/d>1.65)的同时,综合性能最为均衡,因此被确定为核心发酵菌株。加入显著性分析的相关描述。
表4 酵母菌产酯能力的测定结果
Table 4 Ester production capacity of yeast
菌株编号菌株透明圈直径(D)/cm菌落直径(d)/cmD/d值SDM10.92±0.05ac0.53±0.03a1.73±0.05aSDM20.83±0.07bc0.73±0.07a1.14±0.01bSDM30.75±0.09c0.64±0.06a1.17±0.11bSDM40.78±0.04c0.67±0.03a1.17±0.01bHNM30.97±0.03ac0.57±0.03a1.72±0.15aHNM41.10±0.06a0.63±0.04a1.75±0.15aHNM50.94±1.02ac0.67±0.09a1.44±0.11abHNM61.02±0.02ab0.70±0.06a1.47±0.11ab
注:同一列上标字母不同,表示差异显著(P<0.05)。
2.2 酵母菌株鉴定
2.2.1 形态学鉴定
由图3可知,其菌落为奶油白色圆形、边缘整齐、表面光滑且有光泽。通过显微镜观察发现,该酵母的细胞形态多为卵圆形、椭圆形。
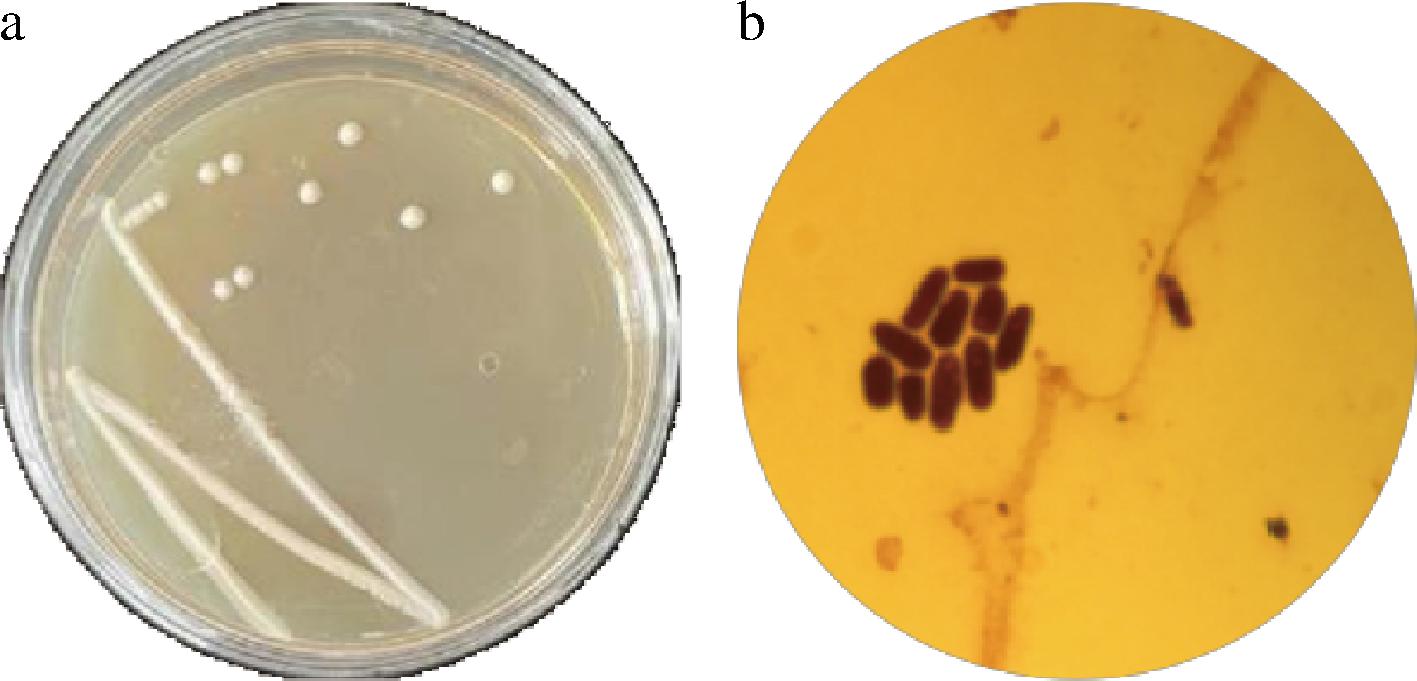
a-28 ℃,48 h;b-1 000×
图3 酵母菌平板形态和细胞形态特征
Fig.3 Colonial and cellular morphology of yeast
2.2.2 ITS基因序列分析及系统发育分析
基因测序结果如图4所示。基于该ITS序列,构建系统发育树,结果如图5所示。序列比对分析显示,菌株SDM1与酿酒酵母(Saccharomyces cerevisiae LC413772.1)及该种内其他模式菌株的序列同源性均高于99%,且在系统发育树中与酿酒酵母典型菌株共同构成一个高支持率的独立进化分支。综合菌落形态、细胞显微特征以及ITS序列分析结果,确定菌株SDM1为酿酒酵母(Saccharomyces cerevisiae),并命名为酿酒酵母SDM1(S.cerevisiae SDM1)。
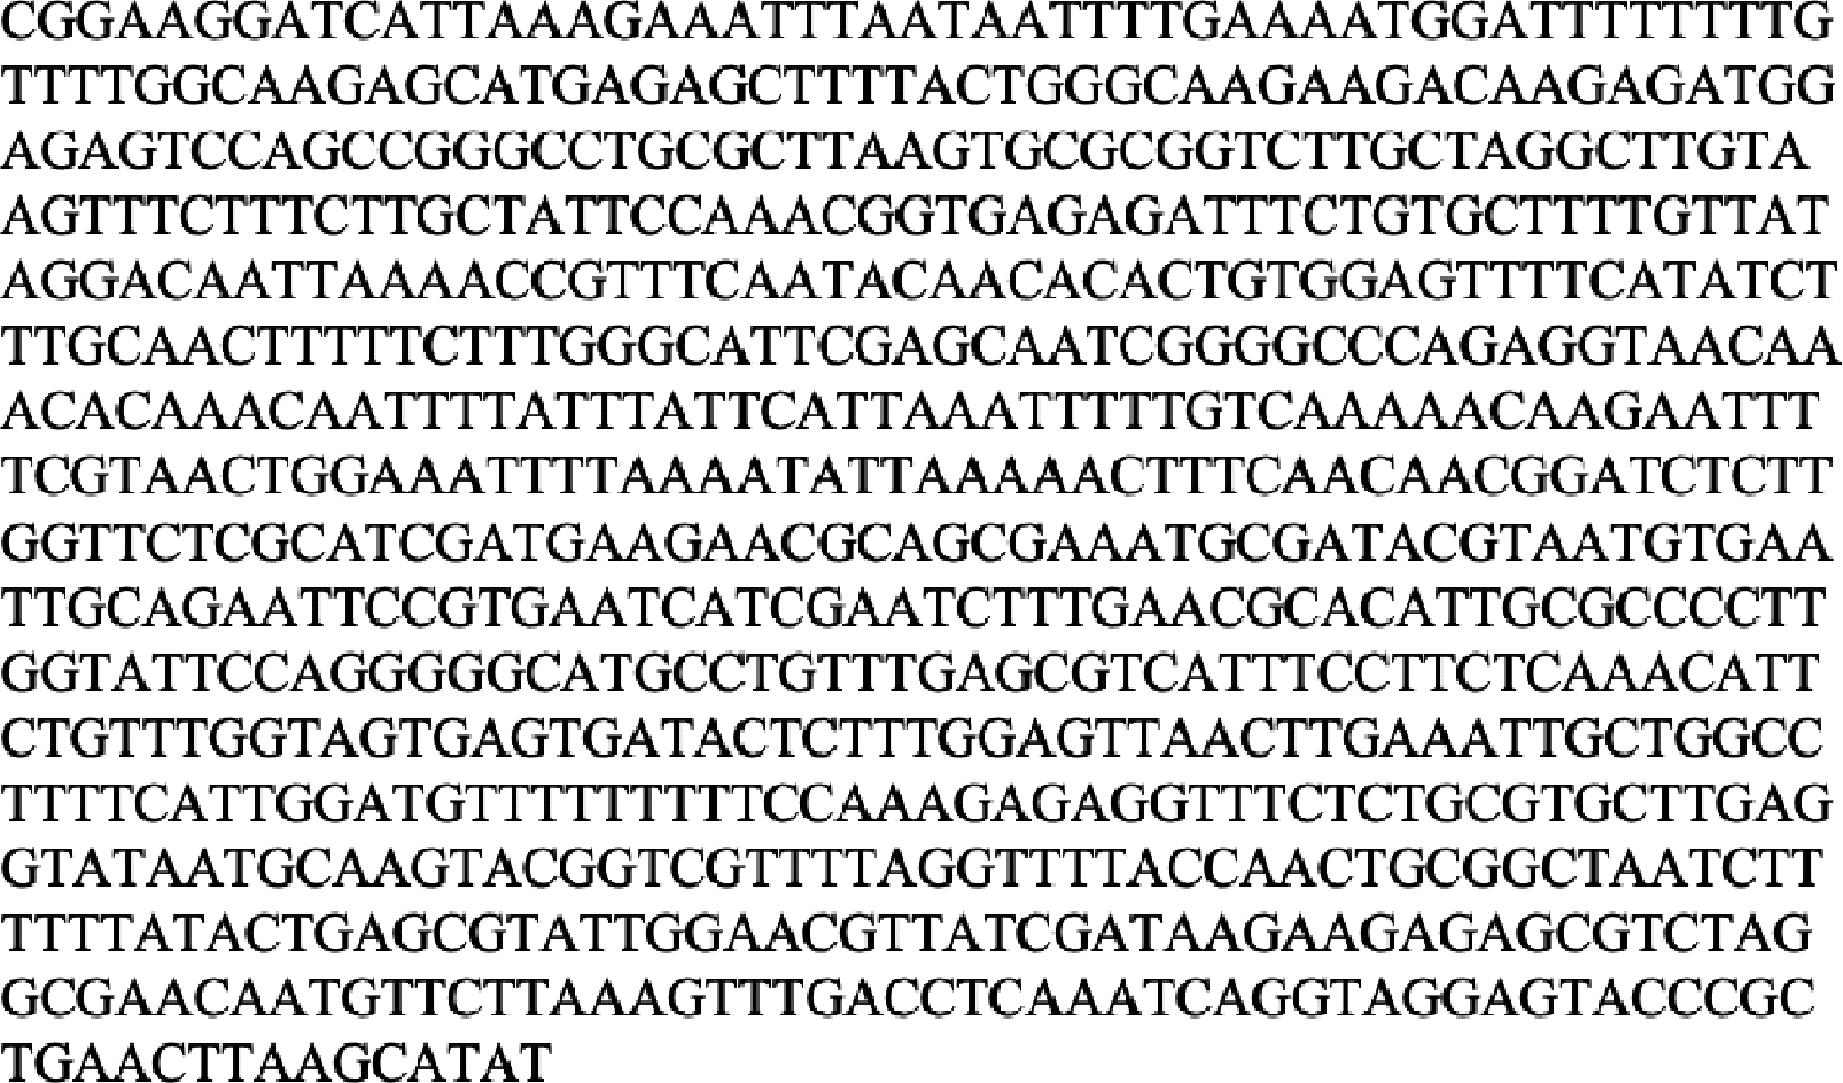
图4 酿酒酵母SDM1的ITS序列
Fig.4 ITS Sequence of S.cerevisiae SDM1
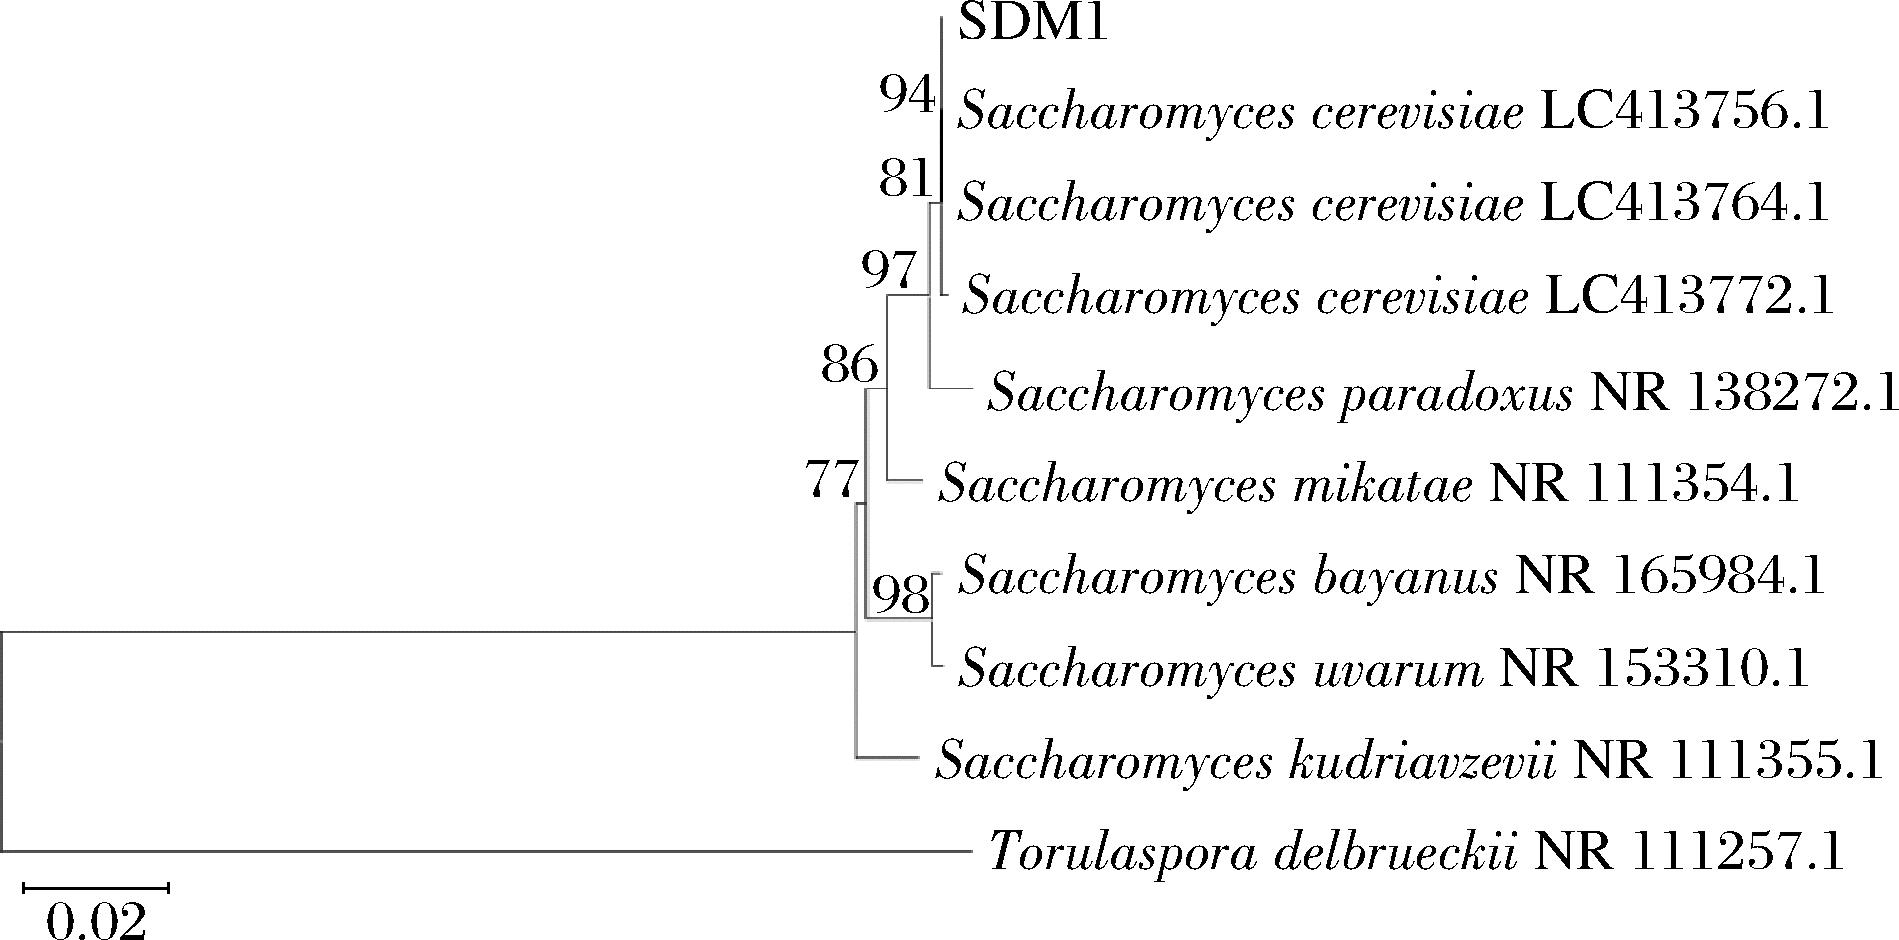
图5 S.cerevisiae SDM1 基因序列系统发育树
Fig.5 Phylogenetic tree of S.cerevisiae SDM1 based on ITS sequence
2.3 碳源种类和浓度对抗氧化活性的影响
如图6-a所示,碳源种类对发酵产物的抗氧化能力具有显著影响。在各类碳源中,以木糖或乳糖培养时,发酵液对·OH的清除能力较强;其中,木糖作为碳源时,发酵液的DPPH自由基与ABTS阳离子自由基清除能力均显著优于其他组别。因此,后续实验选定木糖作为罗汉果渣酵素制备的碳源。如图6-b所示,发酵产物的抗氧化活性随木糖添加量的增加呈先上升后下降的趋势,并在添加量为50 g/L时达到最高。这一变化趋势可能与高糖环境引发的渗透压胁迫有关:过高的木糖浓度会导致培养基渗透压上升,引起微生物细胞失水与代谢抑制,从而影响其生长及抗氧化物质的合成能力[24]。基于该结果,最终确定50 g/L为罗汉果渣酵素制备中木糖的适宜添加浓度。
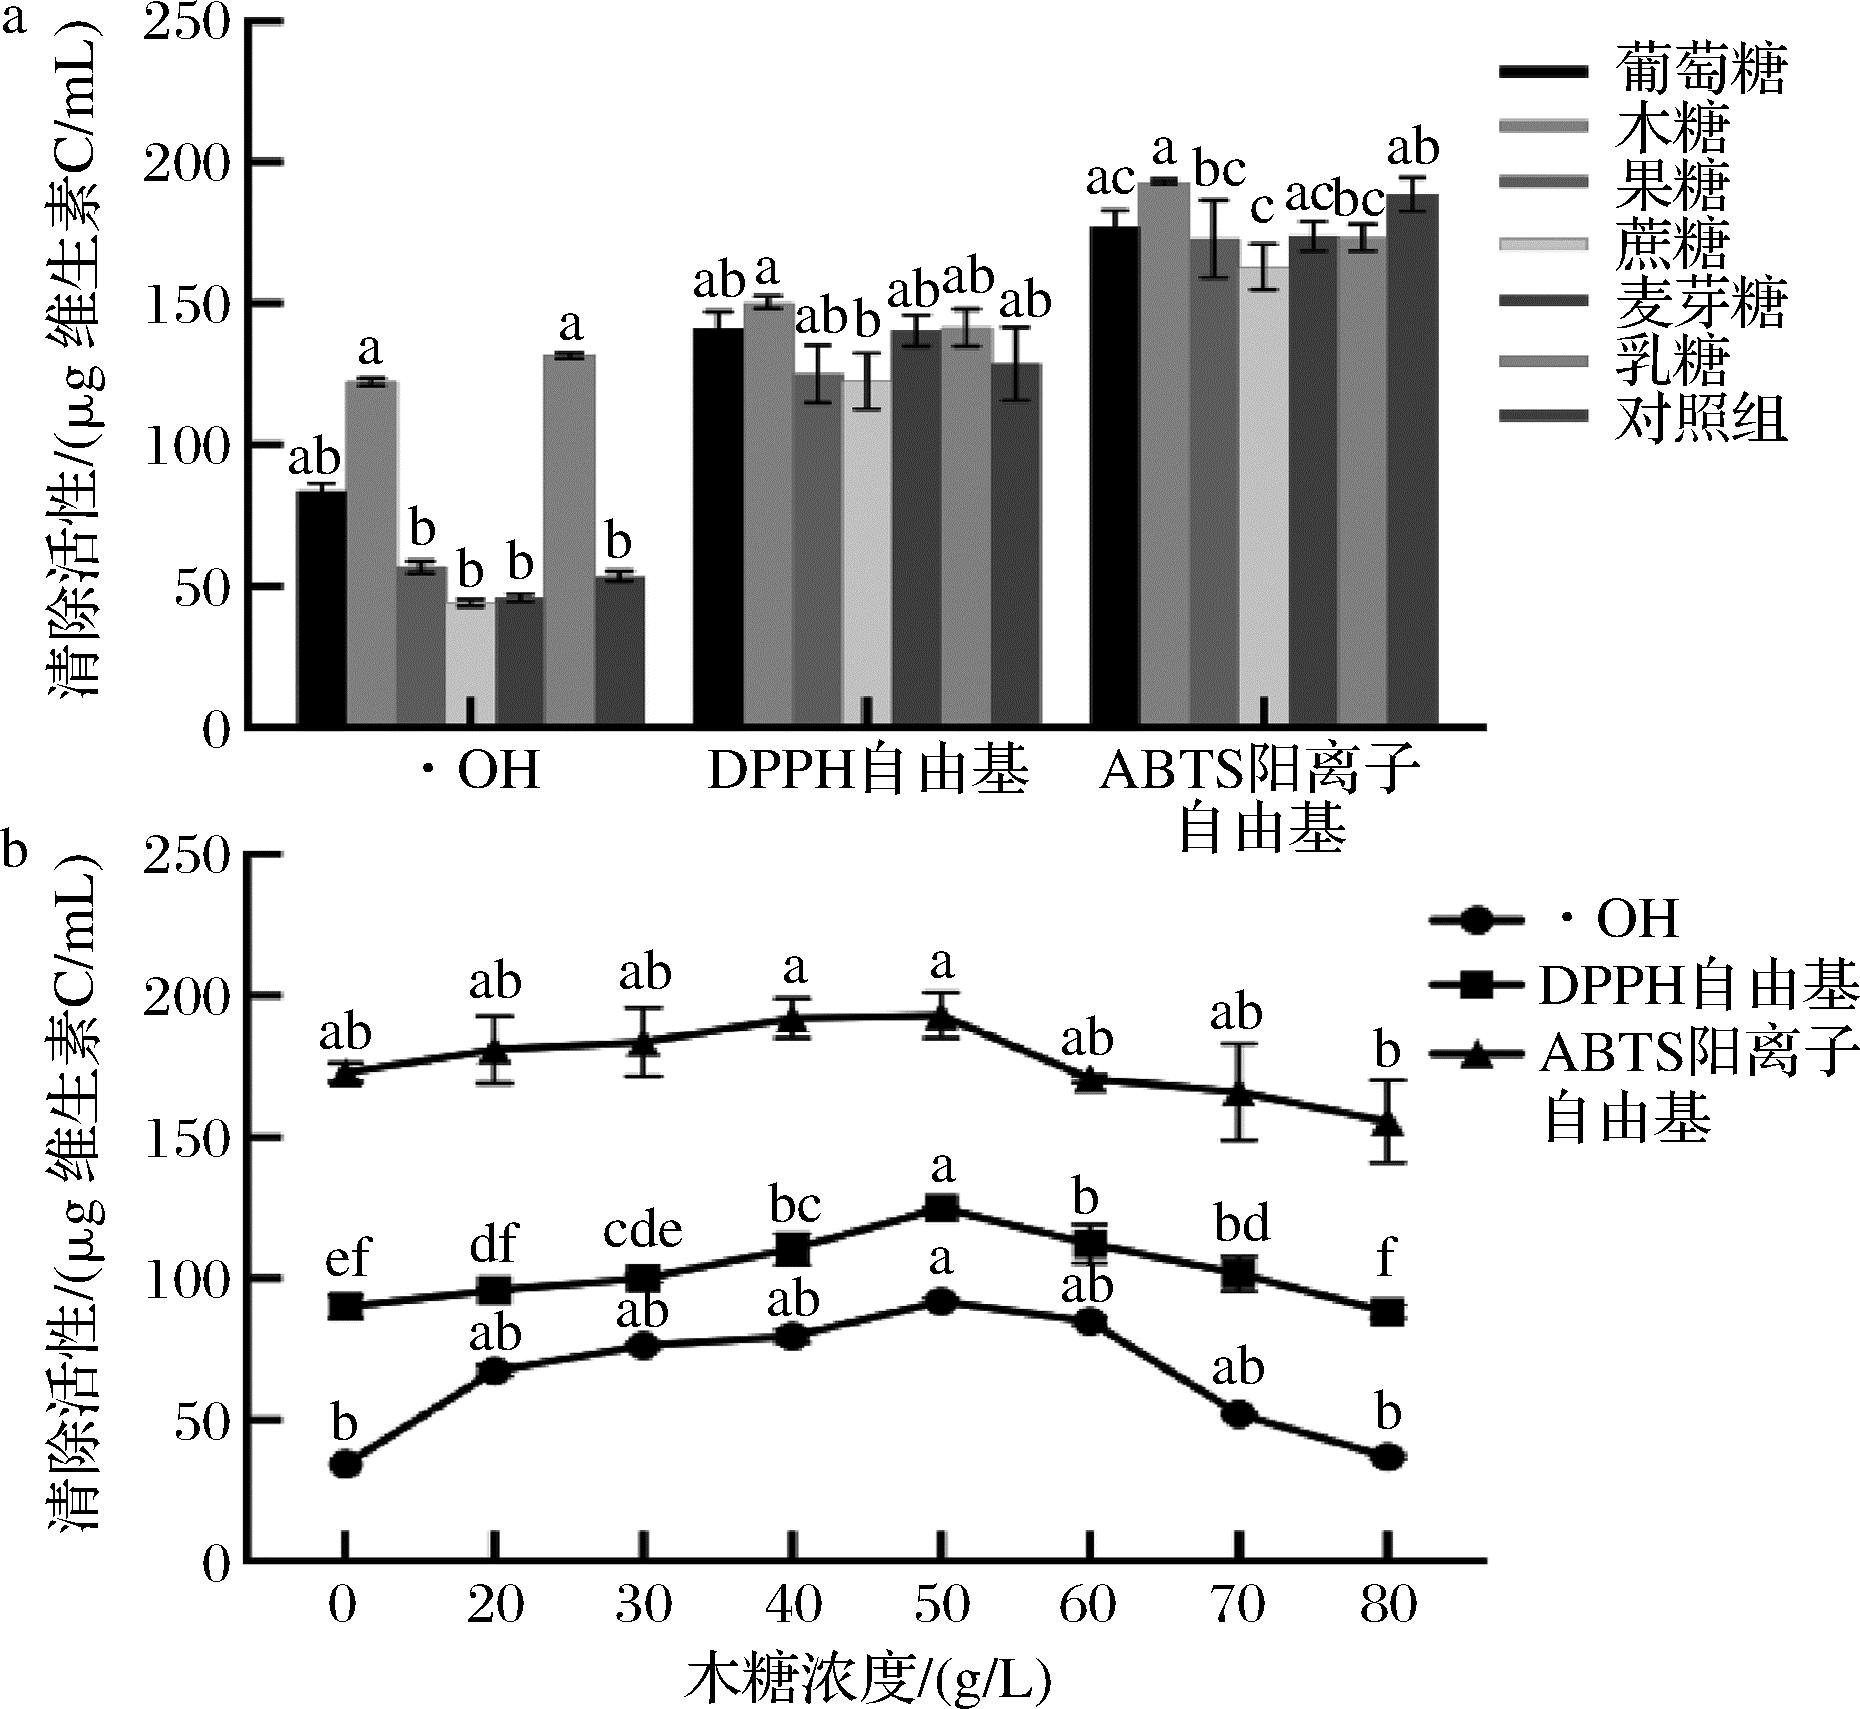
a-碳源种类;b-碳源浓度
图6 碳源种类和浓度对罗汉果渣酵素抗氧化活性的影响
Fig.6 Effects of carbon source types and concentrations on antioxidant activity of S.grosvenorii pomace Jiaosu
注:不同字母表示差异显著(P<0.05),下同。
2.4 罗汉果渣酵素发酵条件优化
2.4.1 单因素试验
本研究系统考察了菌种添加量、料液比、发酵温度与时间对罗汉果渣酵素抗氧化活性的影响。结果如图7所示,表明菌种添加量1.0%、料液比450(mg∶mL)、发酵温度35 ℃、发酵时间12 d时,酵素表现出最优的自由基清除能力。在该优化条件下,·OH自由基、DPPH自由基与ABTS阳离子自由基清除活性分别达到(506.19±2.09)、(223.60±2.90)与(392.27±6.11) μg维生素C/mL。当菌添加量为1%~2.5%时,随着菌添加量的增加,罗汉果渣酵素的自由基清除能力反而降低,说明过高的接种量会导致发酵体系中细胞密度显著上升,可能引发细胞间的空间竞争与底物抑制效应,从而限制菌体生长,降低发酵效率[25]。当料液比处于300~450 (mg∶mL)范围内时,随着浓度升高,自由基清除能力显著增强(P<0.05),表明该阶段浓度偏低会导致水分过多、可利用底物相对不足,从而影响菌种发酵的充分性。当料液比提升至450~500 (mg∶mL)时,清除能力随浓度增加反而下降,这可能是由于高浓度条件下水分活度降低及溶解氧供应受限,抑制了菌体生长,进而对发酵过程产生不利影响[26]。当温度超过菌株最适生长范围时,引起细胞代谢活性降低,进而抑制发酵进程[27]。在发酵前期,清除能力随发酵时间的延长呈显著上升趋势(P<0.05),说明此阶段菌体代谢活跃,有效促进了抗氧化物质的生成与积累[28]。当发酵时间延长至12~15 d,3种自由基的清除能力均出现显著下降(P<0.05)。这表明在底物浓度固定的条件下,随着发酵时间延长,可供菌细胞利用的营养物质逐渐减少;同时菌体密度增加可能导致发酵效率下降,菌群通过自身代谢活动使得自由基清除率有所降低[29]。
a-菌添加量;b-料液比;c-发酵温度;d-发酵时间
图7 不同发酵条件对罗汉果渣酵素抗氧化活性的影响
Fig.7 Effects of fermentation conditions on antioxidant activity of S.grosvenorii pomace Jiaosu
2.4.2 响应面试验结果
在单因素试验确定各因素适宜水平的基础上,采用响应面法优化发酵工艺。以料液比(A)、菌添加量(B)、发酵温度(C)和发酵时间(D)为自变量,羟自由基清除活性(Y)为响应值,依据Box-Behnken设计进行试验,方案与结果见表5。在响应面法优化中,选择·OH清除活性作为关键响应值,主要基于以下3个原因:首先,·OH是生物体系中最具破坏力的活性氧物种,其清除能力是评价抗氧化活性的核心标准;其次,本研究初步发酵结果显示(表7),·OH清除活性在发酵后提升幅度最为显著(约50%),表明该指标对罗汉果渣酵素工艺变化响应灵敏,易于建立有效的优化模型;最后,以·OH清除活性为优化目标,旨在通过工艺调控,定向强化酵素产品针对最苛刻氧化损伤的防御能力,从而凸显其高附加值的功能性定位。利用Design-Expert 12.0软件对表5数据进行多元回归分析,得到如下二次回归方程:Y=575.39-26.72A+15.09B+10.84C+8.19D+20.39AB-2.31AC+20.53AD+22.66BC+35.66BD+6.03CD-60.20A2-31.84B2-39.18C2-37.09D2。
表5 响应面试验方案和结果表
Table 5 Experimental design and results for response surface methodology

试验号A料液比(mg∶mL)B菌添加量(%)C发酵温度(℃)D发酵时间(d)Y ·OH清除能力(μg维生素C/mL)14501.03015500.9024001.03515483.6635001.03012450.2644500.5359525.4654501.0409485.0264501.0309479.3375001.03515480.2684001.0359515.7594501.53515560.30104501.03512571.89114500.53012487.15124001.04012507.93134500.53515460.73144501.5359482.41154501.03512588.65164501.54012565.65174501.03512575.63185001.0359430.25194001.03012497.13205000.53512418.18214001.53512507.47225001.53512483.89234500.54012482.98244501.53012479.20254501.03512570.39265001.04012451.79274501.04015530.70284000.53512523.35294501.03512570.39
对回归模型进行方差分析(ANOVA),结果如表6所示。模型整体具有极高的显著性(P<0.000 1),失拟项不显著(P=0.217 2>0.05),表明模型拟合良好,误差较小,可靠性较高。回归方程的相关系数R2=0.972 5,校正决定系数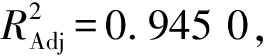 进一步说明模型与实验数据吻合度高。模型中,因素A、BD、A2、B2、C2、D2对响应值的影响极显著(P<0.01);因素B、C、D、AB、AD、BC、BD的影响显著(P<0.05);而交互项AC和CD的影响不显著(P>0.05)。根据各因素的F值大小可知,4个因素对·OH清除率的影响主次顺序为:发酵时间(D)>发酵温度(C)>菌添加量(B)>料液比(A)。
表6 模拟回归系数显著性检验和结果
Table 6 Analysis of variance (ANOVA) for regression model
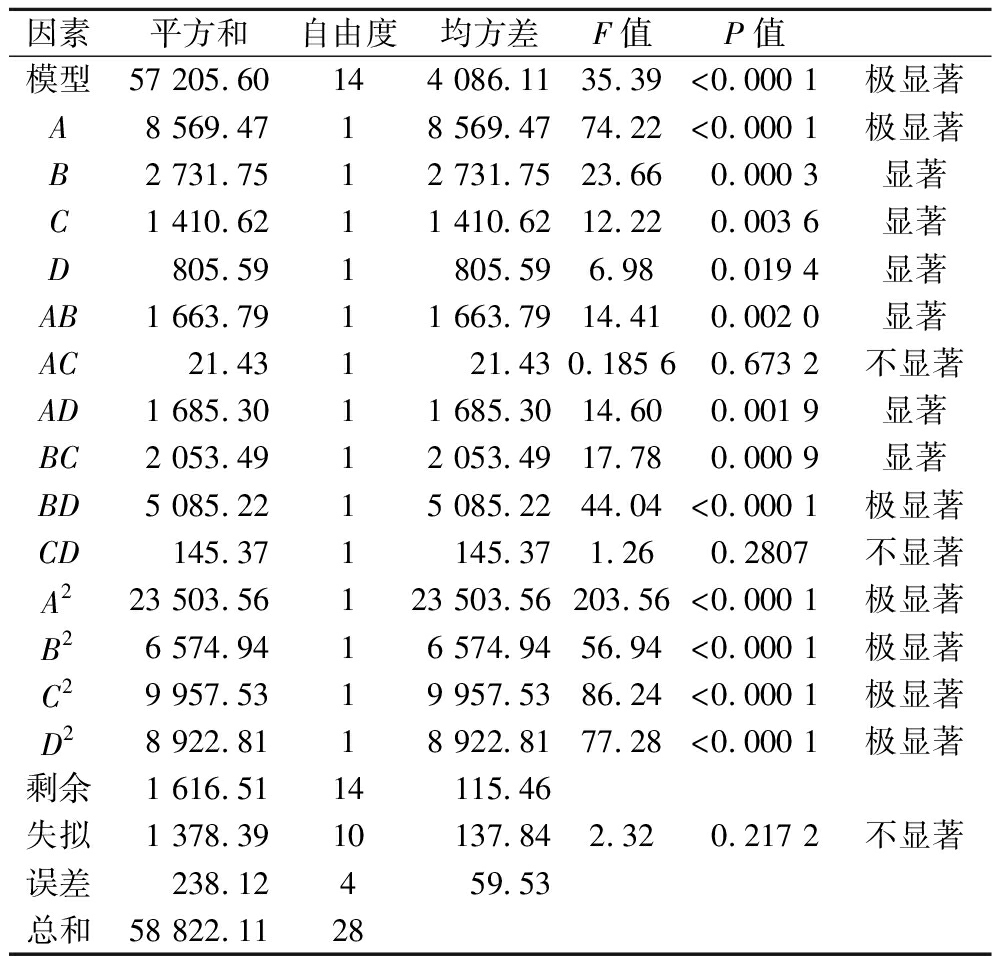
因素平方和自由度均方差F值P值模型57 205.60144 086.1135.39<0.000 1极显著A8 569.4718 569.4774.22<0.000 1极显著B2 731.7512 731.7523.660.000 3显著C1 410.6211 410.6212.220.003 6显著D805.591805.596.980.019 4显著AB1 663.7911 663.7914.410.002 0显著AC21.43121.430.185 60.673 2不显著AD1 685.3011 685.3014.600.001 9显著BC2 053.4912 053.4917.780.000 9显著BD5 085.2215 085.2244.04<0.000 1极显著CD145.371145.371.260.2807不显著A223 503.56123 503.56203.56<0.000 1极显著B26 574.9416 574.9456.94<0.000 1极显著C29 957.5319 957.5386.24<0.000 1极显著D28 922.8118 922.8177.28<0.000 1极显著剩余1 616.5114115.46失拟1 378.3910137.842.320.217 2不显著误差238.12459.53总和58 822.1128
图8展示了料液比(A)、菌添加量(B)、发酵温度(C)和发酵时间(D)4个因素之间的交互作用对羟自由基清除率影响的响应面分析结果。经Design-Expert软件分析,得到罗汉果渣酵素的最佳发酵条件为:菌添加量1.27%、料液比446.40 (mg∶mL)、发酵温度36.62 ℃、发酵时间13.13 d,该条件下·OH清除活性预测值为583.75 μg维生素C/mL。结合实际操作可行性,将上述条件简化为:菌添加量1.3%、料液比446 mg/mL、发酵温度37 ℃、发酵时间13 d。基于此优化条件进行3次重复验证实验,测得·OH清除活性为(580.98±19.25) μg维生素C/mL,与模型预测值接近,表明响应面法所得优化条件可靠,模型具有良好的预测能力。
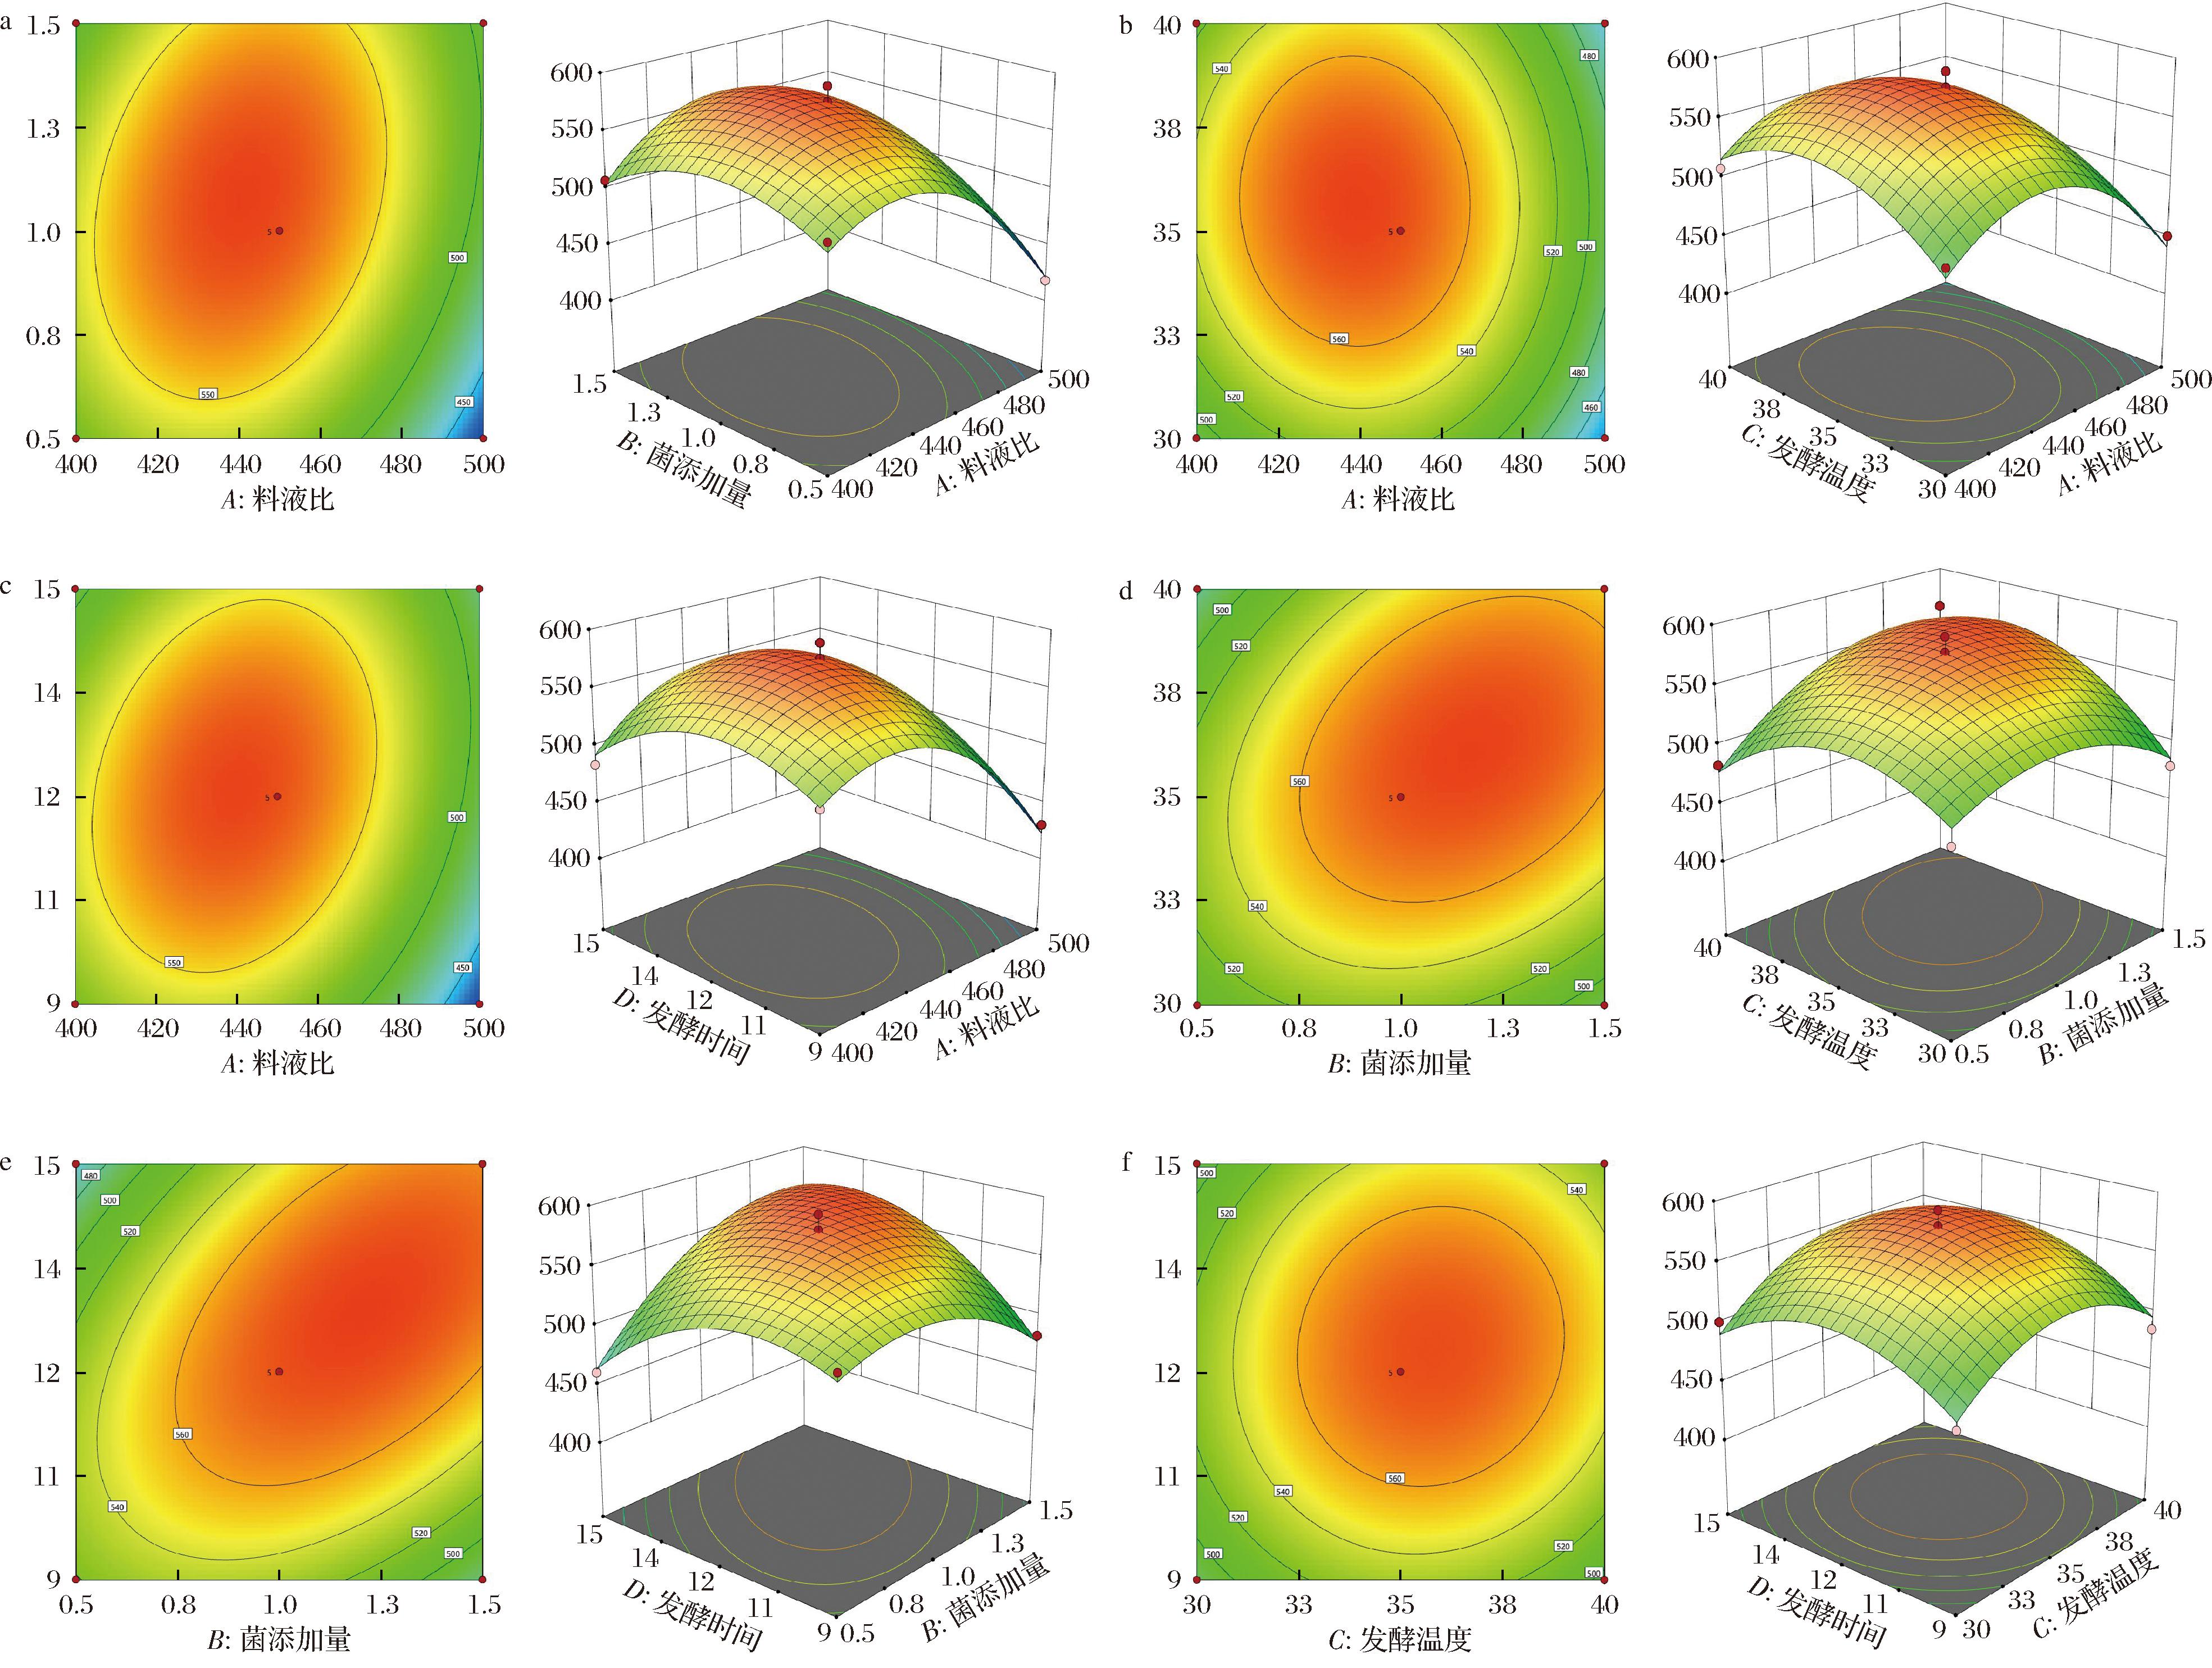
a-A(料液比)与B(菌添加量);b-A(料液比)与C(发酵温度);c-A(料液比)与D(发酵时间);d-B(菌添加量)与C(发酵温度);e-B(菌添加量)与D(发酵时间);f-C(发酵温度)与D(发酵时间)
图8 各因素交互作用对羟基自由基清除率影响的响应面和等高线图
Fig.8 Response surface and contour plots for hydroxyl radical scavenging rate
2.5 复合发酵罗汉果渣酵素的综合分析
酵母菌SDM1和乳酸菌JYLP002复合发酵罗汉果渣酵素0 d和13 d的各种指标如表7所示,发酵过程中各指标发生了显著变化。pH值由初始的4.20显著降低至3.00,反映了乳酸菌产酸代谢活跃,同时创造了利于酵母菌稳定生长的环境。此外,发酵显著改变了罗汉果渣中关键活性物质的含量与组成。总酚含量从1.38 mg GAE/mL增加至1.62 mg GAE/mL,这可能是由于乳酸菌与酵母菌分泌的酶系协同作用,促进了果渣细胞壁中结合态酚类物质的释放与转化[26]。而总黄酮含量从14.46 μg RT/mL减至2.39 μg RT/mL,这可能与发酵过程中部分黄酮类物质发生氧化、糖苷水解或结构转化有关[30],其具体代谢路径有待进一步研究。与物质基础变化相对应,发酵产物的抗氧化活性得到全面增强。ABTS阳离子自由基清除活性从464.56 μg维生素C/mL增至515.71 μg维生素C/mL,DPPH自由基清除活性从352.60 μg维生素C/mL增至396.96 mg维生素C/mL,·OH清除活性从386.32 μg维生素C/mL增至580.98 μg维生素C/mL。尤其值得注意的是,对·OH的清除能力提升最为显著,这可能与发酵过程中产生的某些特异性酚酸或小分子活性肽的积累密切相关[31]。综合来看,酵母菌SDM1与乳酸菌JYLP002复合发酵通过生物释放或转化,实现了罗汉果渣酵素抗氧化性能的实质性飞跃,为罗汉果渣的高值化利用提供了有效策略。
表7 发酵前后罗汉果渣酵素的各指标结果
Table 7 Physicochemical indexes of S.grosvenorii pomace Jiaosu before and after fermentation
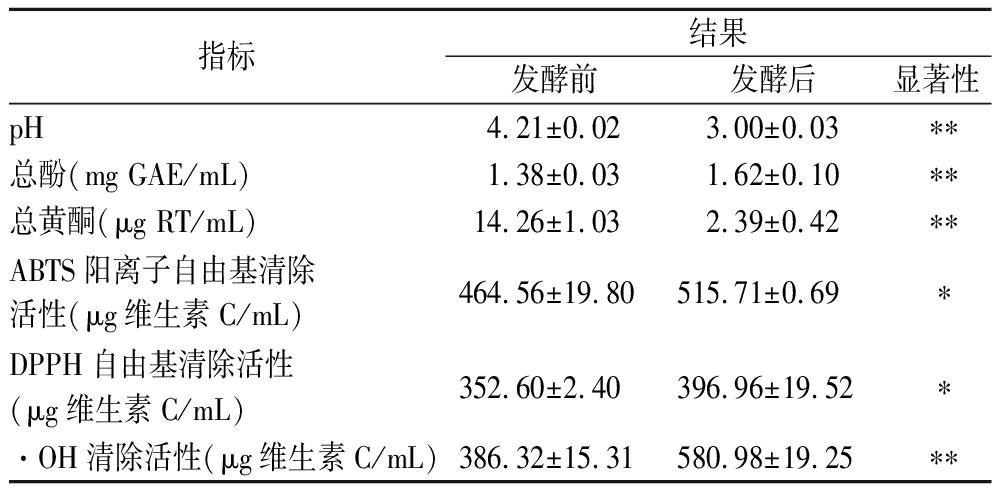
指标结果发酵前发酵后显著性pH4.21±0.023.00±0.03**总酚(mg GAE/mL)1.38±0.031.62±0.10**总黄酮(μg RT/mL)14.26±1.032.39±0.42**ABTS阳离子自由基清除活性(μg维生素C/mL)464.56±19.80515.71±0.69*DPPH自由基清除活性(μg维生素C/mL)352.60±2.40396.96±19.52*·OH清除活性(μg维生素C/mL)386.32±15.31580.98±19.25**
注:*表示差异显著(P<0.05),**表示差异极显著(P<0.01)。
3 结论
本研究通过筛选获得1株适应罗汉果渣酵素发酵环境的专用酵母菌,该菌株具备耐酸、耐高糖、低产乙醇和高产酯等优良特性。以此为基础,对罗汉果渣酵素制备工艺进行了系统优化,明确了以50 g/L木糖作为最佳碳源,确定了发酵的关键工艺参数[菌添加量1.3%、料液比460(mg∶mL)、37 ℃发酵13 d]。该优化工艺体系为发酵过程抗氧化性能的提升提供了可靠的保障。验证实验结果表明,经复合发酵处理后,罗汉果渣酵素的·OH自由基、DPPH自由基与ABTS阳离子自由基清除活性较未发酵原料均得到显著提升。尤为重要的是,·OH清除活性在发酵阶段实现了高达50.39%的提升,充分证明了复合发酵在激发罗汉果渣抗氧化潜能方面的卓越效果。结合前人研究与本实验结果,抗氧化活性的增强主要归因于发酵过程中微生物酶系对原料基质的生物转化作用。这一过程主要通过微生物酶系破坏植物细胞壁结构,促使结合态酚类物质释放。本研究成果成功实现了罗汉果渣从固体废弃物向高附加值功能性产品的转化,不仅拓展了罗汉果产业的产业链,同时兼具环境效益和经济效益,为同类果蔬加工副产物的资源化利用提供了有价值的技术参考和实践范例。
[1] 岳希洁, 姚晓云, 向瑞琪, 等.果蔬酵素食品的研究进展[J].现代食品, 2025(17):62-66.Yue X J, Yao X Y, Xiang R Q, et al.Research progress of fruit and vegetable enzyme foods[J].Modern Food, 2025(17):62-66.
[2] Liu Z B, Zhu X F, Mohsin A, et al.Embryogenic callus induction, cell suspension culture, and spectrum-effect relationship between antioxidant activity and polyphenols composition of Siraitia grosvenorii cultured cells[J].Industrial Crops and Products, 2022, 176:114380.
[3] Soejarto D D, Addo E M, Kinghorn A D.Highly sweet compounds of plant origin:From ethnobotanical observations to wide utilization[J].Journal of Ethnopharmacology, 2019, 243:112056.
[4] 吴涓江, 黄华学, 李文楚, 等.罗汉果果渣的化学成分及抗炎活性研究[J].天然产物研究与开发, 2023, 35(7):1124-1134.Wu J J, Huang H X, Li W C, et al.Study on chemical constituents and anti-inflammatory activity of the pomace of Siraitia grosvenorii[J].Natural Product Research and Development, 2023, 35(7):1124-1134.
[5] Qiang X, Zhao M, Xia T, et al.Effect of different fermentation methods on the physicochemical, bioactive and volatile characteristics of wolfberry vinegar[J].Foods, 2025, 14(6):1078.
[6] Ali Khan S A, Zhang M W, Liu L, et al.Co-culture submerged fermentation by Lactobacillus and yeast more effectively improved the profiles and bioaccessibility of phenolics in extruded brown rice than single-culture fermentation[J].Food Chemistry, 2020, 326:126985.
[7] Pan Y B, Yin X, Zhang J G, et al.Effect of co-fermentation of yeast and lactic acid bacteria on color of mulberry wine[J].Food Bioscience, 2026, 76:108220.
[8] 蒋羽柔, 蔡建, 高秀, 等.云南杨梅发酵液中酵母菌筛选及耐受性研究[J].中国酿造, 2024, 43(3):145-150.Jiang Y R, Cai J, Gao X, et al.Screening and stress tolerance of yeasts in Morella nana fermentation broth[J].China Brewing, 2024, 43(3):145-150.
[9] 徐晓裕, 吴慧敏, 王鑫炜, 等.蟠桃表皮产酶非酿酒酵母的分离鉴定及发酵特性研究[J].中国食品添加剂, 2023, 34(6):48-57.Xu X Y, Wu H M, Wang X W, et al.Isolation, identification and fermentation characteristics of enzymeproducing non-Saccharomyces cerevisiae from the epidermis of flat peach[J].China Food Additives, 2023, 34(6):48-57.
[10] 唐雨杰, 王祖文, 赵品瑶, 等.青脆李野生酵母菌的筛选鉴定与耐受性研究[J].食品与发酵工业, 2025, 51(13):117-125.Tang Y J, Wang Z W, Zhao P Y, et al.Screening, identification, and tolerance of wild yeast strains isolated from green crisp plum[J].Food and Fermentation Industries, 2025, 51(13):117-125.
[11] 任彩霞, 王立霞, 农茹芸, 等.柿子酒酵母菌的筛选鉴定及应用[J].中国酿造, 2025, 44(10):149-156.Ren C X, Wang L X, Nong R Y, et al.Screening, identification and application of yeasts for persimmon wine[J].China Brewing, 2025, 44(10):149-156.
[12] 王子萱. 耐酸产酯酵母的筛选及其在沙棘果酒中的应用[D].呼和浩特:内蒙古农业大学, 2024.Wang Z X.Screening of acid-resistant ester producing yeast and application in sea buckthorn fruit wine[D].Hohhot:Inner Mongolia Agricultural University, 2024.
[13] Liu S, Jia M Y, Chen J J, et al.Removal of bound polyphenols and its effect on antioxidant and prebiotics properties of carrot dietary fiber[J].Food Hydrocolloids, 2019, 93:284-292.
[14] Huang Q, Zhang H, Xue D.Enhancement of antioxidant activity of Radix Puerariae and red yeast rice by mixed fermentation with Monascus purpureus[J].Food Chemistry, 2017, 226:89-94.
[15] Zhong H, Li B K, Fan Z X, et al.Isolation, purification, characterization, and analysis of the antioxidant activity of antioxidant peptides from walnut milk fermented with Lactobacillus paracasei SMN-LBK[J].Food Bioscience, 2024, 61:104547.
[16] Rinaldo D, Sotin H, Petro D, et al.Browning susceptibility of new hybrids of yam (Dioscorea alata) as related to their total phenolic content and their phenolic profile determined using LC-UV-MS[J].LWT, 2022, 162:113410.
[17] Xu H Y, Feng L X, Deng Y, et al.Change of phytochemicals and bioactive substances in Lactobacillus fermented citrus juice during the fermentation process[J].LWT-Food Science and Technology, 2023, 180:114715.
[18] 沙如意, 王珍珍, 徐成龙, 等.三种食用植物酵素中酵母菌的分离鉴定及耐受性试验[J].生物资源, 2020, 42(1):124-130.Sha R Y, Wang Z Z, Xu C L, et al.Isolatation, indentfication and tolerance of yeasts from three kinds of edible plant Jiaosu[J].Biotic Resources, 2020, 42(1):124-130.
[19] Kuda T, Sarengaole, Takahashi H, et al.Alcohol-brewing properties of acid- and bile-tolerant yeasts co-cultured with lactic acid bacteria isolated from traditional handmade domestic dairy products from Inner Mongolia[J].LWT, 2016, 65:62-69.
[20] 武晓靖. 乳酸菌及酵母菌复合发酵燕麦乳的研制[D].呼和浩特:内蒙古农业大学, 2024.Wu X J.Development of complex fermented oat milk with lactic acidbacteria and yeasts[D].Hohhot:Inner Mongolia Agricultural University, 2024.
[21] Zhao Y J, Meng K W, Fu J Y, et al.Protein engineering of invertase for enhancing yeast dough fermentation under high-sucrose conditions[J].Folia Microbiologica, 2023, 68(2):207-217.
[22] 吴锐佳, 王雨辰, 黄先敏, 等.咖啡果优良本土酵母菌筛选及发酵特性[J].食品研究与开发, 2024, 45(22):202-211.Wu R J, Wang Y C, Huang X M, et al.Screening and fermentation characterization of elite indigenous yeast strains for coffee pulp[J].Food Research and Development, 2024, 45(22):202-211.
[23] 蔡丽琴, 王伟军, 李延华, 等.食用酵素发酵代谢及功能特性研究进展[J].食品工业科技, 2021, 42(20):408-414.Cai L Q, Wang W J, Li Y H, et al.Research progress on fermentation metabolism and functional characteristics of edible fermented extract[J].Science and Technology of Food Industry, 2021, 42(20):408-414.
[24] Xie L Y, Zhou L H, Zhang R R, et al.Material composition characteristics of Aspergillus cristatus under high salt stress through LC-MS metabolomics[J].Molecules, 2024, 29(11):2513.
[25] 邓星成, 任志强, 曾波, 等.高粱两步法厌氧发酵产己酸研究[J].食品科学技术学报, 2024, 42(1):164-176.Deng X C, Ren Z Q, Zeng B, et al.Study on caproic acid production by two-step anaerobic fermentation of sorghum[J].Journal of Food Science and Technology, 2024, 42(1):164-176.
[26] Ouyang Z, Tian J C, Yan X F, et al.Effects of different concentrations of dissolved oxygen or temperatures on the growth, photosynthesis, yield and quality of lettuce[J].Agricultural Water Management, 2020, 228:105896.
[27] 王蕾, 卢庆华, 吴翰林, 等.响应面法优化莜麦精酿啤酒发酵工艺及其品质分析[J].中国酿造, 2026, 45(1):276-281.Wang L, Lu Q H, Wu H L, et al.Optimization of fermentation process by response surface methodology and quality analysis of naked oats craft beer[J].China Brewing, 2026, 45(1):276-281.
[28] Johnson N A N, Ekumah J N, Ma Y K, et al.Optimization of fermentation parameters for the production of a novel selenium enriched mulberry (Morus nigra) wine[J].LWT - Food Science and Technology, 2023, 178:114608.
[29] He D X, Duan D Y, Lyu X Y, et al.Optimization of solid-state fermentation process of using response surface method and addressing its antioxidant and hypoglycemic activity evaluation[J].Fermentation-Basel, 2024, 10(3):153.
[30] Li T L, Jiang T, Liu N, et al.Biotransformation of phenolic profiles and improvement of antioxidant capacities in jujube juice by select lactic acid bacteria[J].Food Chemistry, 2021, 339:127859.
[31] Gao L, Ben T T, You F, et al.Hydroxyl radicals scavenging activity and corresponding mechanism of polyphenols in black pepper[J].Journal of Food Measurement and Characterization, 2025, 19(8):5489-5498.