皮肤作为人体的第一道防线,长期暴露在紫外线、污染物等外源刺激下,会产生过量活性氧(reactive oxygen species,ROS)。一旦其超过内源性抗氧化系统的清除阈值时,氧化应激级联反应随即启动,导致细胞损伤甚至诱发多种皮肤疾病[1-2]。因此,开发安全有效的抗氧化产品一直是皮肤研究领域的热点。相较于传统的化学抗氧化剂[3],植物富含多酚、黄酮、多糖等抗氧化成分,可以实现多靶点清除ROS,被视为皮肤抗氧化剂的理想来源与研究热点[4]。然而,这些活性成分在使用时存在一定限制,如天然黄酮多与糖基结合,导致其脂溶性低,不易被皮肤吸收;多糖分子质量过高,影响细胞靶点结合率等,为此近些年多数研究者致力于利用黑曲霉[5]、酵母[6]等微生物对植物进行发酵,以提高多酚、黄酮等物质的溶出率与生物可及性,并形成更为丰富的抗氧化活性小分子群,实现多靶点增效[7-8]。近年来乳酸菌在发酵菌种选用方面备受关注,其优势在于:1)分泌纤维素酶、果胶酶等胞外酶,能够部分降解或破坏细胞壁,促进活性成分的溶出,如发酵粘液乳杆菌(Limosilactobacillus fermentum GD01)和植物乳植杆菌(Lactiplantibacillus plantarum BHP03)发酵使豆奶总酚含量提升16.90%~51.91%,游离酚和不溶性结合酚显著增加[9];2)借助还原酶、糖苷酶等重构黄酮、多酚等活性物质的结构,改善其皮肤利用度,如特定L.plantarum能高效地将人参皂苷转化为珍稀的次级皂苷[10];3)发酵过程同步产生氨基酸、有机酸、维生素等皮肤友好代谢产物,促进角质层更新,强化皮肤屏障。
铁皮石斛是药食同源药材,其抗氧化潜力已被广泛验证。为提高铁皮石斛的功效,研究者使用多种微生物对其进行生物加工,但是物料预处理方式、微生物品种、加工方式各异,结果亦呈多样化,但微生物菌株影响较大。此外,石斛多糖的降解也是生物加工的研究焦点,如林华嗣等[11]采用嗜酸乳杆菌和副干酪乳酪杆菌混合液态发酵,发现多糖分子质量从184.40 kDa显著下降至91.27 kDa。但对石斛而言,其含有的生物碱、芪类、黄酮等活性成分,已有研究表明德氏乳杆菌保加利亚亚种发酵不同来源的铁皮石斛可重塑酚类谱系[12],进而改善其抗氧化活性。近年来,发酵中药在日化产品开发中受到较多关注,但关于铁皮石斛发酵产物在皮肤应用方面研究较少。
本研究以铁皮石斛为原料,共采用29株不同的乳酸菌进行发酵,通过检测发酵前后总多糖、总多酚、总黄酮,以及5项自由基的清除能力,进而采用主成分分析降维,对不同乳酸菌发酵产物进行综合评分并排序,筛选出较优菌株。随后,在细胞水平验证铁皮石斛-乳酸菌发酵产物的抗氧化效能,并初步探究其机制,以期为铁皮石斛皮肤产品开发提供研究基础。
1 材料与方法
1.1 材料与试剂
铁皮石斛干条,安利(中国)日用品有限公司鉴定并提供;7株植物乳植杆菌(Lpp001、Lpp002、Lpp003、Lpp004、Lpp005、Lpp006、Lpp007)、9株发酵粘液乳杆菌(Lcb001、Lcb002、Lcb003、Lcb004、Lcb005、Lcb006、Lcb007、Lcb008、Lcb009)、4株泰国肠球菌(Ecs001、Ecs002、Ecs003、Ecs004)、3株戊糖片球菌(Pcp001、Pcp002、Pcp003)、3株乳酸片球菌(Pca001、Pca002、Pca003)、2株鼠李糖乳酪杆菌(Hdg001、Hdg002)、1株魏斯氏菌(Wps001),系统发酵与制药工程研究室分离与鉴定;皮肤成纤维(human skin fibroblasts,HSF)细胞,中国科学院典型培养物保藏委员会细胞库;杜氏改良Eagle培养基(Dulbecco's modified eagle medium,DMEM)培养基,上海中乔新舟生物科技有限公司;胎牛血清,南京诺唯赞生物科技股份有限公司;细胞丙二醛(malondialdehyde,MDA)测定试剂盒(微板法),南京建成生物工程研究所有限公司;CCK-8试剂盒、活性氧检测试剂盒、超氧化物歧化酶(superoxide dismutase,SOD)活性检测试剂盒(WST-8法)、谷胱苷肽还原酶(glutathione peroxidase,GSH-Px)检测试剂盒[5,5′双二硫代(2-硝基苯甲酸)法],上海碧云天生物技术有限公司;其他试剂均为分析纯。
1.2 仪器与设备
PCR仪,美国伯乐公司;全自动细胞计数仪,美国赛默飞公司;CO2培养箱,上海博迅实业有限公司;恒温水浴锅,上海精宏实验设备有限公司;冷冻干燥机,北京照生行仪器设备有限公司;电子天平,梅特勒-托利多仪器有限公司;5804R台式离心机,Eppendorf股份有限公司;超净工作台,苏州安泰空气技术有限公司;SpectraMax M2多功能酶标仪,美谷分子仪器(上海)有限公司。
1.3 实验方法
1.3.1 铁皮石斛的发酵工艺
参考蒋丙婷等[12]的方法,取不同乳酸菌甘油管,MRS平板划线活化2~3次后接种至MRS培养基,37 ℃培养24 h即得种子液。铁皮石斛干条粉碎并过80目筛,按照1∶50(质量比)加入去离子水,高压灭菌(121 ℃,20 min)冷却后,按照2%的接种量分别接种种子液,37 ℃培养24 h后,8 000 r/min离心10 min,取上清液,冷冻干燥4 ℃保存待测。
1.3.2 总酚、总黄酮、总多糖的检测
参考文献[13],采用福林酚法测定总酚含量;亚硝酸钠-硝酸铝法检测总黄酮含量;苯酚-硫酸法检测总多糖含量。
1.3.3 不同自由基清除能力的检测
参考文献[14-15]的方法,对不同发酵组的DPPH自由基、ABTS阳离子自由基、·O2-、·OH的清除能力以及铁还原力(ferric ion reducing antioxidant power,FRAP)进行检测。
1.3.4 优势发酵菌对铁皮石斛理化性质的影响
活菌数:采用平板稀释法,参考GB 4789.35—2023《食品安全国家标准 食品微生物学检验 乳酸菌检验》;pH值:采用pH酸度计测定;总酸含量:采用酸碱滴定法,参照GB 12456—2021《食品安全国家标准 食品中总酸的测定(含第1号修改单)》,以乳酸计量;总糖、还原糖含量:采用DNS比色法。
1.3.5 细胞抗氧化功效评价
1.3.5.1 对H2O2诱导的HSF细胞氧化损伤的保护作用
取对数生长期的HSF细胞以2×10⁴/孔接种于96孔培养板中,实验共分组如下:正常对照组;H2O2损伤模型组;阳性对照组(维生素C 100 μg/mL);未发酵铁皮石斛(NFDC)处理组(10、100 μg/mL);发酵铁皮石斛(FDC)处理组(10、100 μg/mL)。培养至细胞汇合度60%~70%,无血清DMEM培养基培养12 h,阳性对照组给予含维生素C的 DMEM培养基,NFDC和FDC处理组分别加入含不同浓度药物的DMEM 培养基,PBS清洗2次,随后加入900 μmol/L H2O2,作用2 h,CCK-8检测并计算细胞存活率。
1.3.5.2 HSF细胞ROS的检测
细胞按照1.3.5.1节所示方法接种于6孔板,同法处理后,每孔加入2′,7′-二氯二氢荧光素二乙酸酯(2′,7′-dichlorodihydrofluorescein diacetate,DCFH-DA)避光孵育20 min,PBS清洗3次,流式细胞仪检测胞内ROS荧光强度以反映ROS水平。
1.3.5.3 HSF细胞MDA、SOD、GSH-Px的检测
按1.3.5.2节方法操作,使用细胞裂解液在冰浴下裂解,收集裂解液,分别采用MDA、SOD、GSH-Px测定试剂盒进行检测。
1.3.6 数据统计分析
所有实验均以至少3个独立样本的3次重复为1组进行。采用Excel 2021进行数据整理与统计;采用SPSS 27.0对数据进行主成分分析;采用GraphPad Prism 8.0对数据进行显著性分析,实验数据进行单因素方差分析(analysis of variance,ANOVA),随后进行Tukey’s多重比较检验分析。
2 结果与分析
2.1 总多酚、总黄酮、总多糖含量检测结果
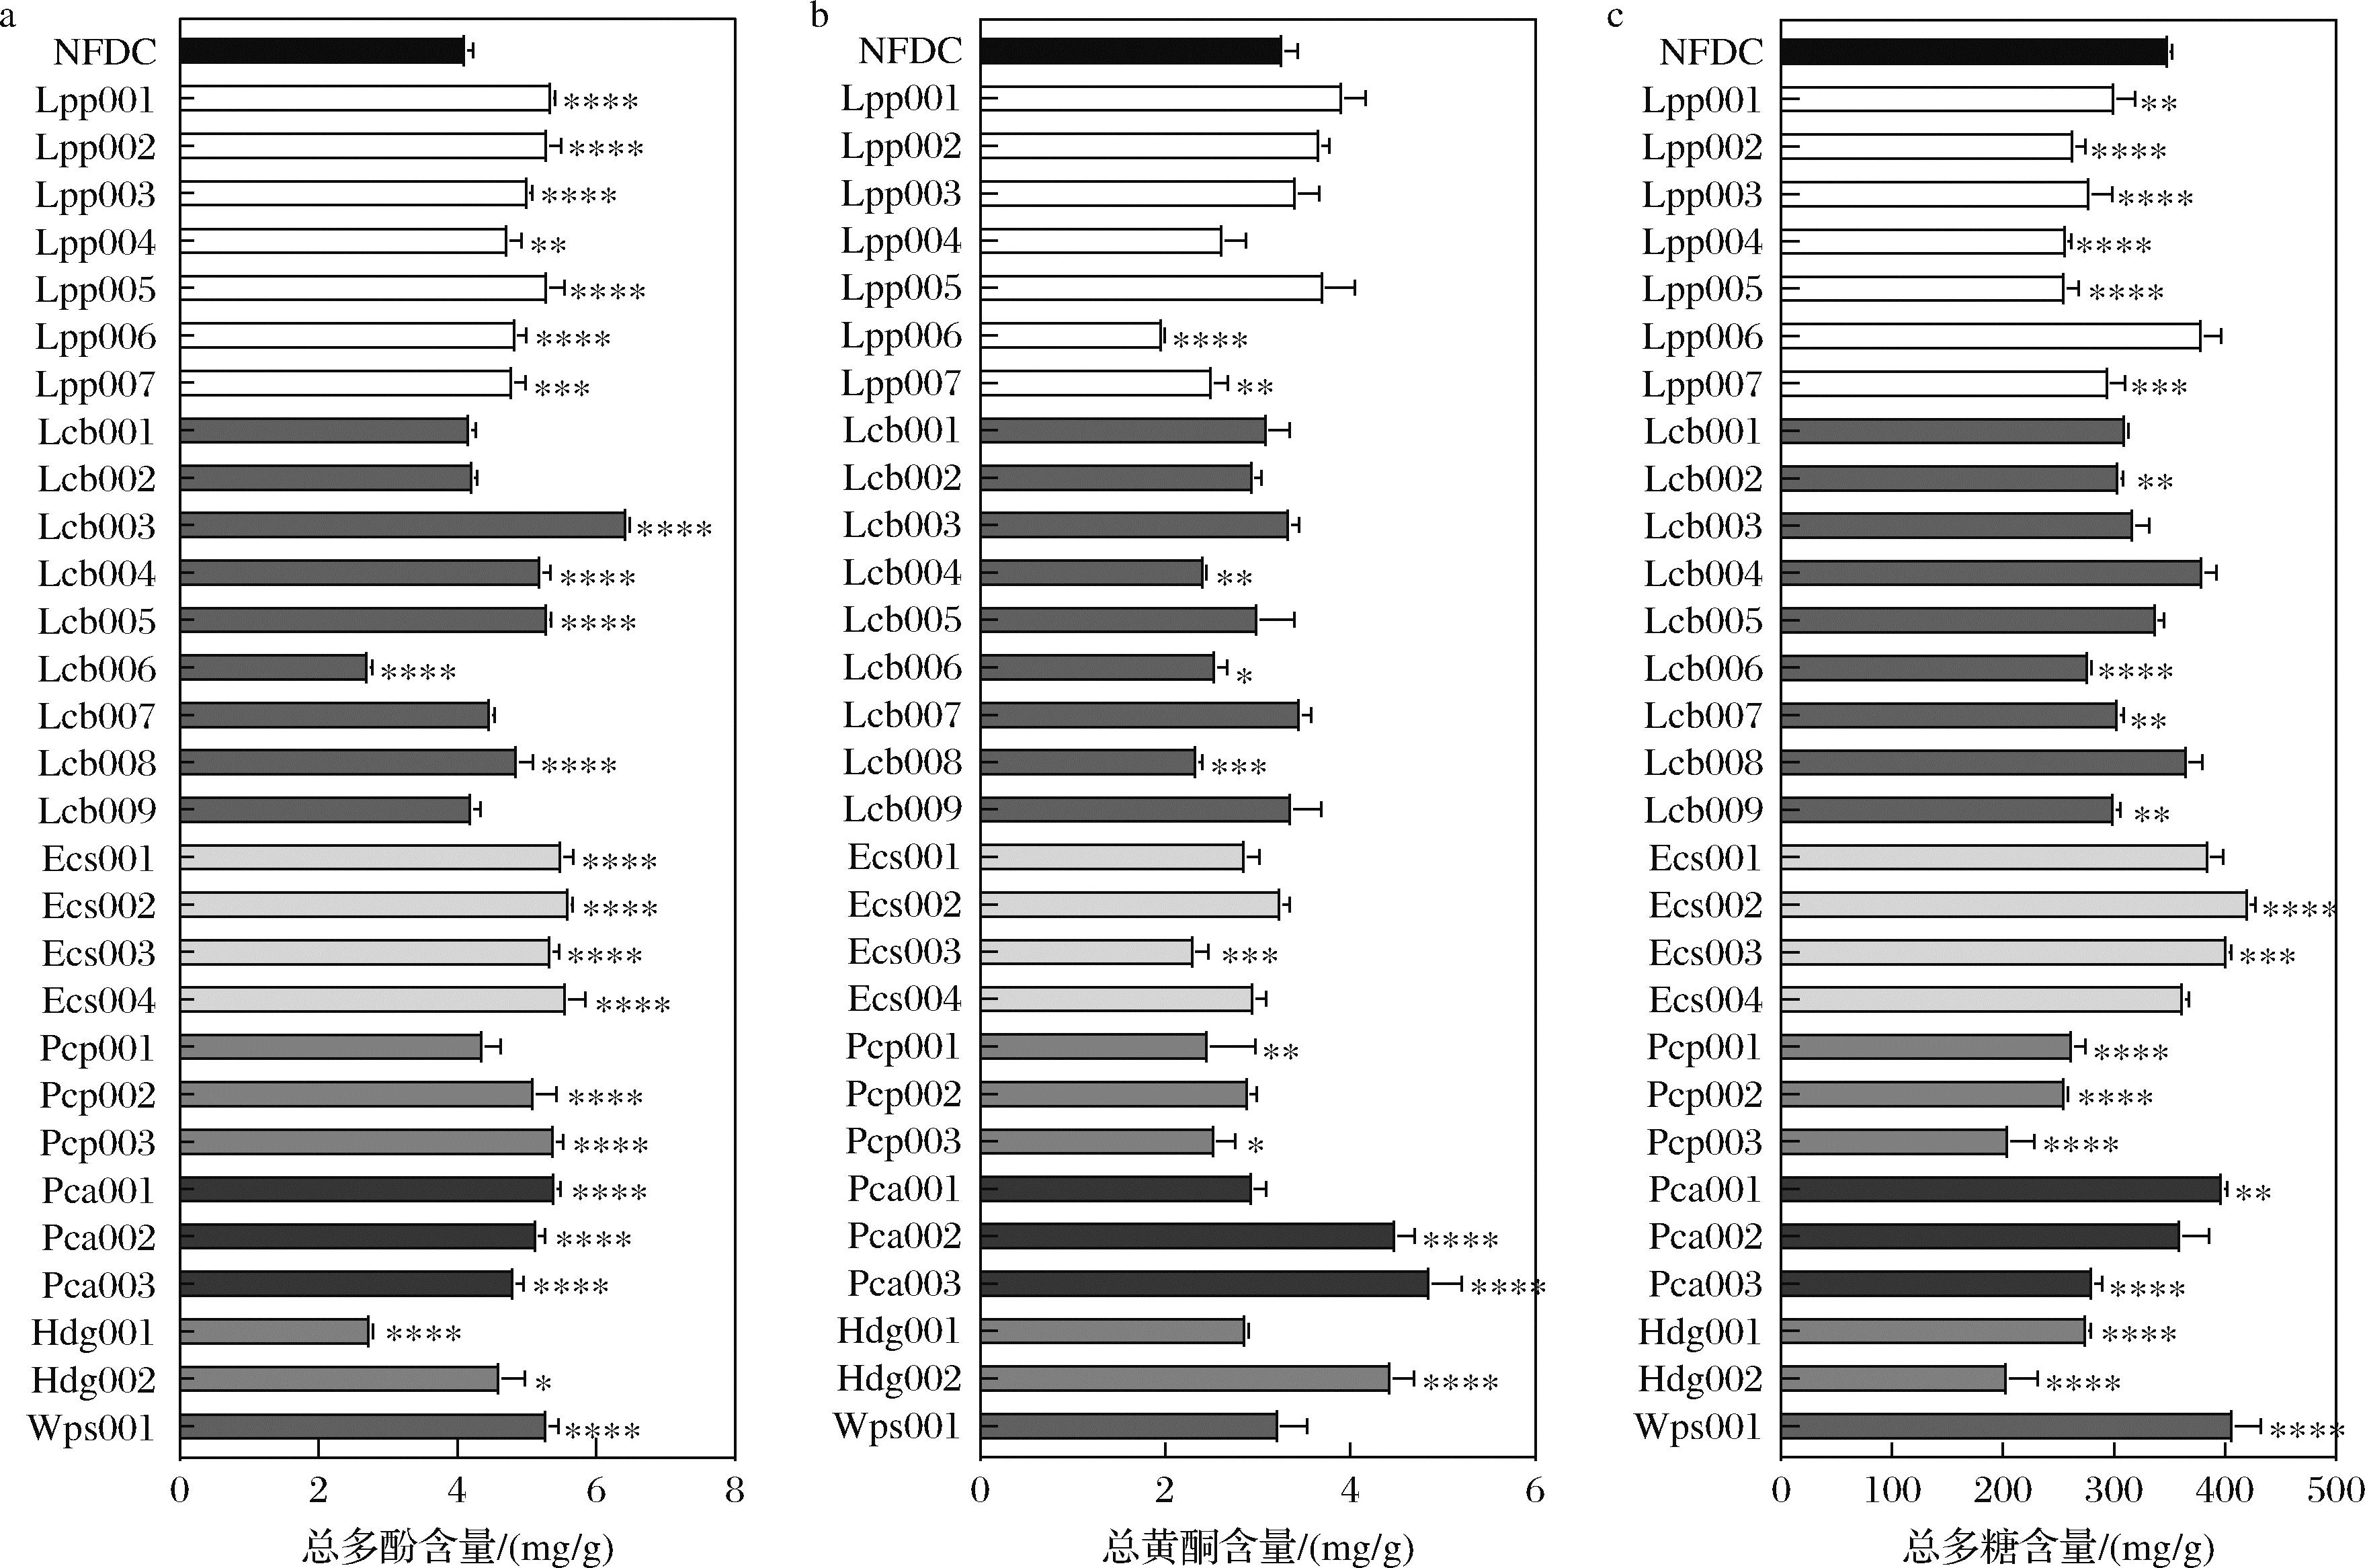
不同乳酸菌发酵液的总多酚、总黄酮与总多糖变化结果如图1所示。与对照组[(0.41±0.01)%]相比,29株菌经发酵后,22株多酚含量出现显著上升,2株显著降低,5株无显著变化,其中,Lcb003增幅最高(增加56.07%)。这归因于菌株间酶系差异,不同乳酸菌分泌的水解酶系具有差别,影响铁皮石斛细胞壁破坏及结合态多酚的释放[16-18];部分酚类也可能被菌体降解或转化,导致个别组下降[12]。
a-多酚含量;b-黄酮含量;c-多糖含量
图1 不同发酵组总多酚、总黄酮、总多糖的含量
Fig.1 The contents of total polyphenols, total flavonoids, and total polysaccharides in different fermentation groups
注:*,P<0.05;**,P<0.01;***,P<0.001;****,P<0.000 1 vs NFDC(下同)。
总黄酮趋势与多酚并不一致。除Pca002、Pca003和Hdg002显著上升外,其余组黄酮含量显著降低或无显著性变化。引起黄酮含量下降的原因可能是氧化为其他产物,乳酸菌也能分泌特定的糖苷酶对黄酮进行水解,使黄酮糖苷水解为游离的易被氧化的黄酮苷元[19],进而在多酚氧化酶、过氧化物酶等作用下转化为醌类化合物和氧化偶联化合物,使得检测值降低[20]。
多糖作为铁皮石斛的标志性成分,其变化与菌株特性直接相关,29株菌种中有16株的多糖含量出现显著下降,4株显著上升,9株无显著变化,总体呈现含量下降趋势,这与王丹等[21]研究结论一致。乳酸菌对多糖的代谢较为复杂,一方面乳酸菌通过分泌β-葡萄糖苷酶、果胶酶等多糖水解酶,将铁皮石斛中的不溶性多糖转化为可溶性寡糖,导致发酵液中还原糖含量显著增加[19];与此同时,乳酸菌还具有利用糖类基质合成胞外多糖的能力[22],这导致多糖含量上升,而多糖下降主要源于乳酸菌的持续水解和利用,通常乳酸菌能利用分子质量较小、分支少的低分子糖类,经糖酵解途径分解[23-24],但不同菌株的利用能力差异很大,还受到培养基碳源的种类和数量影响。
2.2 不同自由基清除检测结果
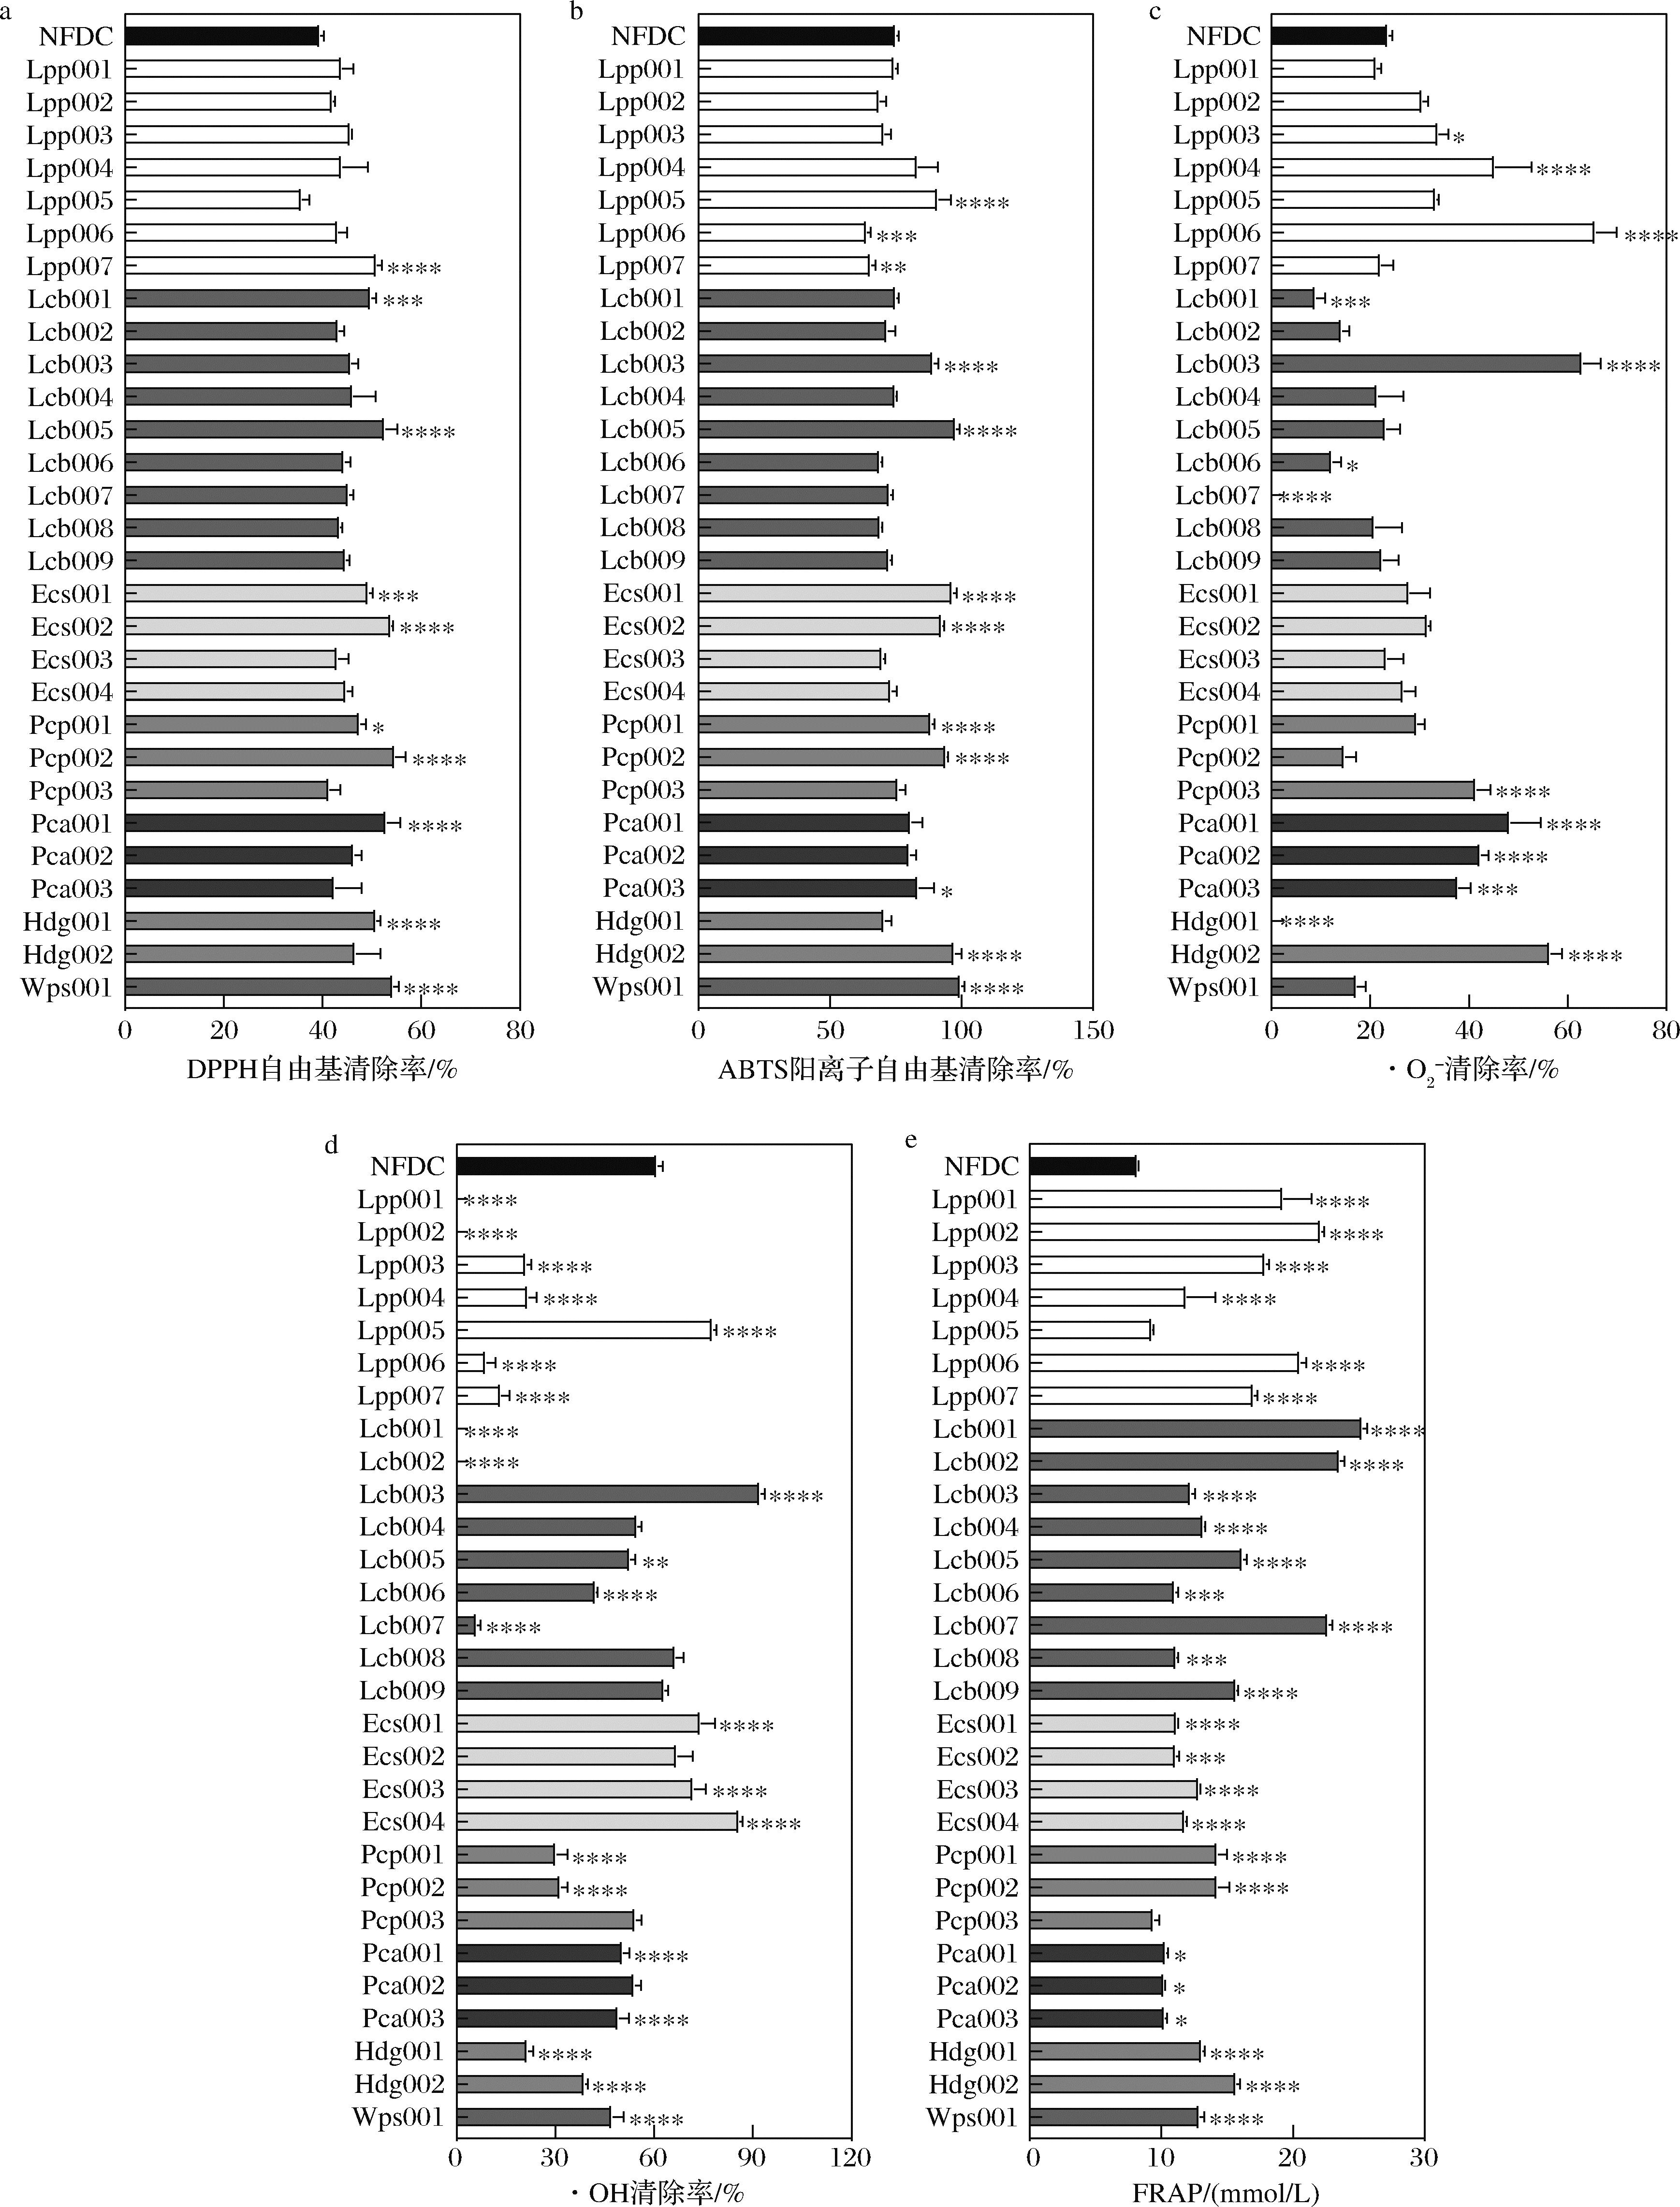
清除自由基是抗氧化的核心机制,其清除效率被视为抗氧化能力的直接体现[25-26]。然而,不同体外模型所生成的自由基种类各异,单一实验难以避免片面性,可以从单电子转移、活性氧清除与氧化还原能力3个层面进行综合评估。本研究整合了5种经典方法:DPPH自由基和ABTS阳离子自由基(单电子转移)、·O2-和·OH(活性氧清除)、FRAR(氧化还原),对不同菌株发酵产物的自由基清除谱进行评估,力求全面评估抗氧化水平。
29株乳酸菌发酵物对不同自由基的清除率如图2所示。同一种样品对不同自由基的清除能力有差别。所有发酵物的FRAP均上升,其中Lcb001、Lcb002、Lpp002增幅最大,分别达到对照组的3.07、2.86、2.70倍;10组发酵物对DPPH自由基清除能力较对照显著增强,其中Pcp002、Wps001、Ecs002提升幅度最高,依次为对照组的1.38、1.37和1.36倍;10株显著上调对ABTS阳离子自由基清除率,其中Wps001、Lcb005、Hdg001提升最高,分别是对照组的1.33、1.30、1.30倍;9株对·O2-清除率显著提升,Lpp006、Lcb003、Hdg002清除率分别增至对照组的2.77、2.66、2.38倍;而仅有5株菌对·OH清除率显著改善,其中Lcb003、Ecs004、Lpp005增幅居前,分别是对照组的1.51、1.41、1.28倍。
a-DPPH自由基清除率;b-ABTS阳离子自由基清除率;c-·O2-清除率;d-·OH清除率;e-FRAP
图2 不同发酵组对不同自由基的清除率
Fig.2 The scavenging rates of different fermentation groups on various free radicals
2.3 不同乳酸菌发酵铁皮石斛的综合评价
2.3.1 相关性分析
相关性分析用于量化变量间的关联程度,对29种发酵产物的8个指标进行相关性分析,结果如图3所示。在26对相关系数中,14对呈正相关,其中2对达到显著水平,1对为极显著;12对为负相关,均未达显著水平。总多糖与DPPH自由基、·OH呈弱正相关;总多酚与ABTS阳离子自由基、·O2-、·OH呈中度正相关,且均显著;总黄酮与ABTS阳离子自由基、·O2-呈弱正相关,但未达显著水平,上述结果提示,提升总多酚含量对提升体外抗氧化活性最具实效。鉴于8个指标存在信息重叠,后续采用主成分分析实现降维,以客观评价不同菌株发酵产物的综合性能。
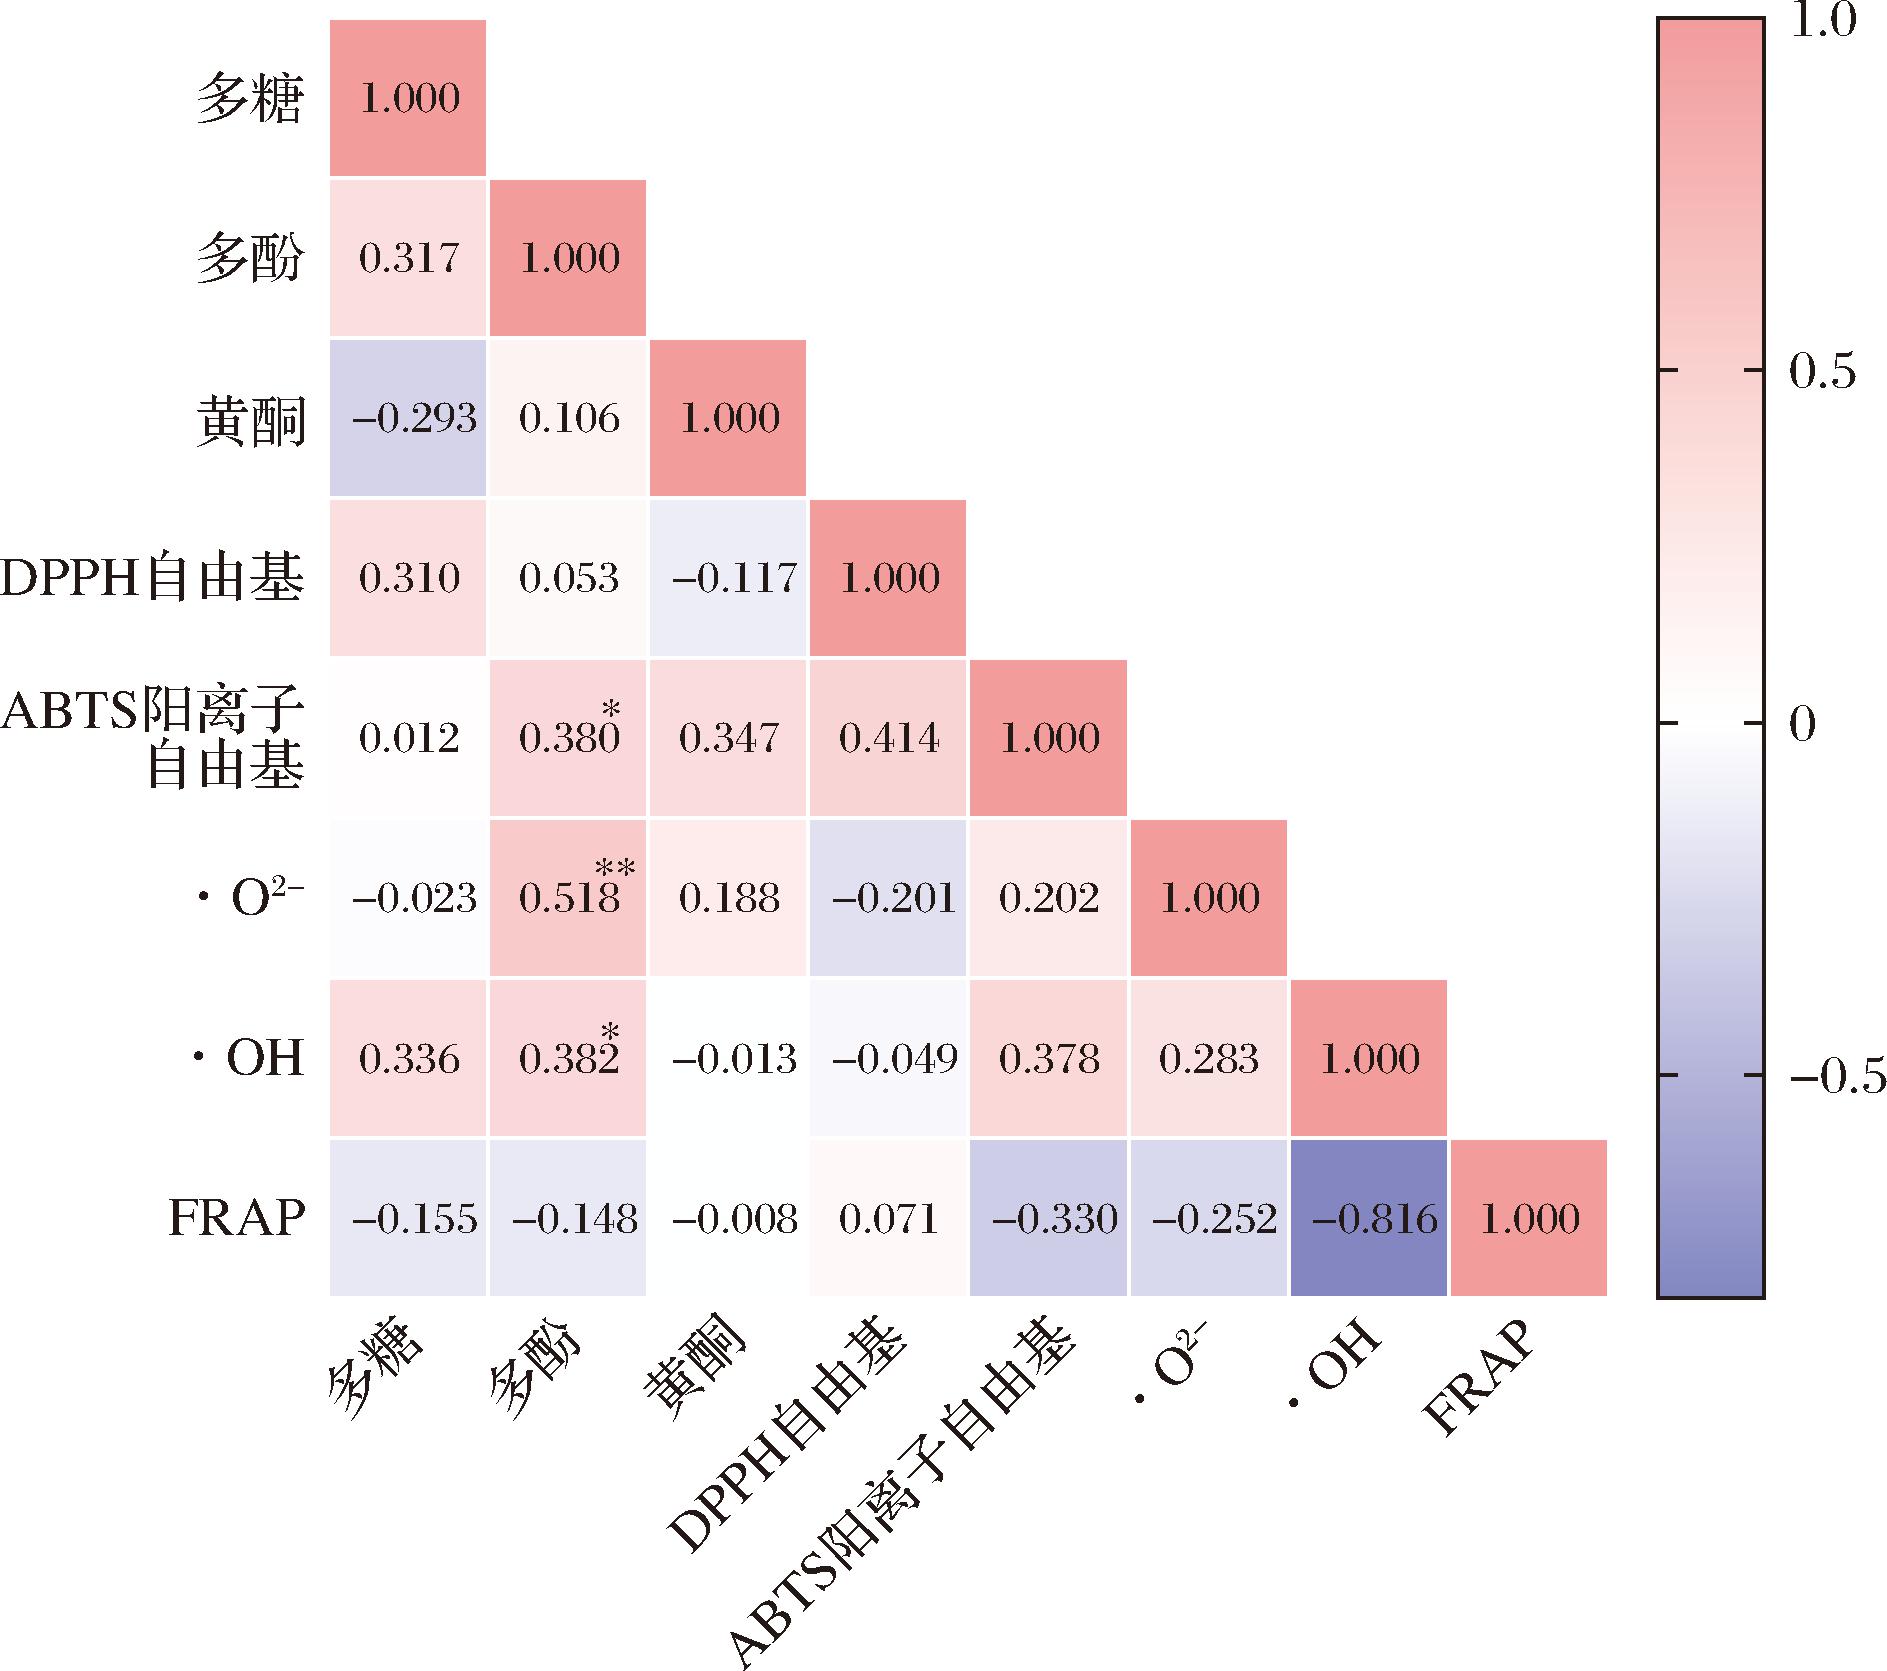
图3 发酵铁皮石斛指标间的相关性分析 Fig.3 Correlation analysis of main components and antioxidant activities in lactic acid fermentation of D.officinale
注:红色为正相关,蓝色为负相关,颜色深度与相关系数绝对值呈正比。
2.3.2 主成分分析
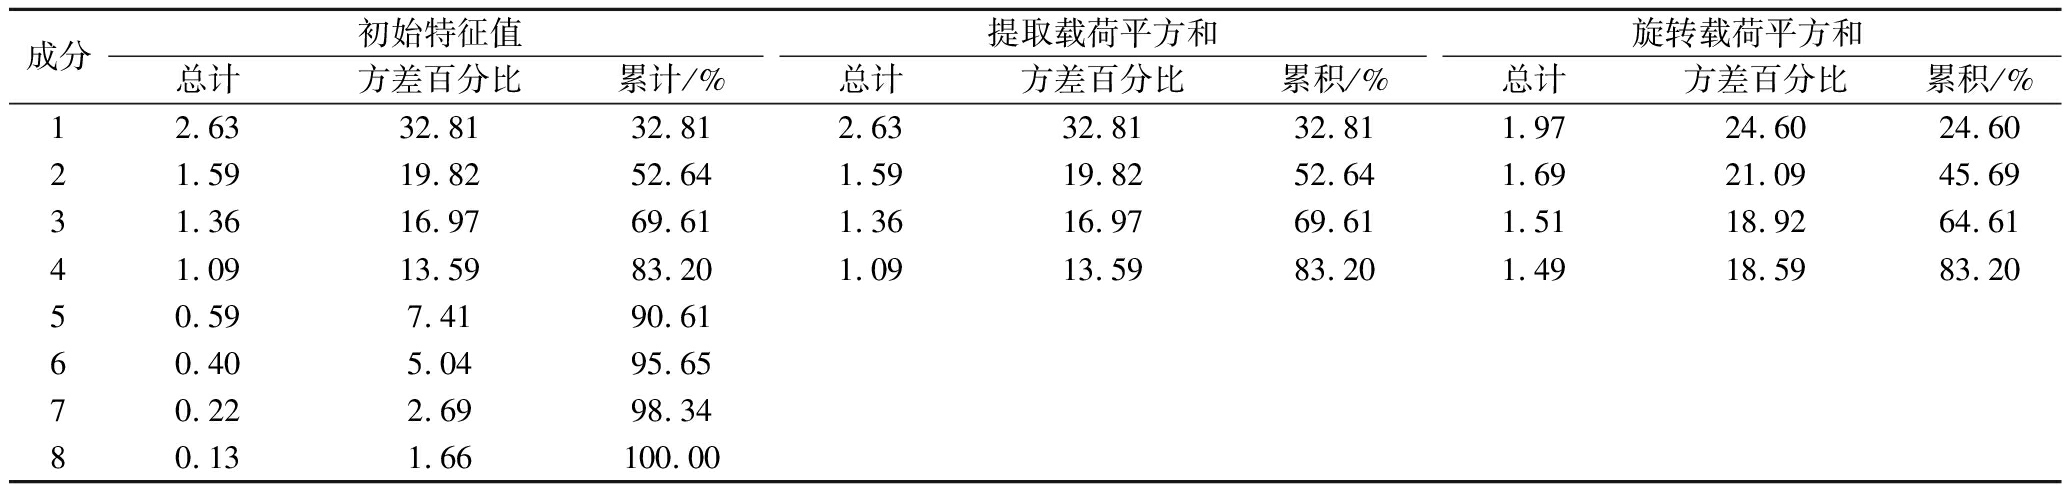
参考黄宁馨等[27]的方法,对上述数据进行标准化处理,标准化方法为每一变量值与其平均值之差除以该变量的标准差,使用SPSS 27.0对标准化后的8项指标进行主成分分析,结果如表1所示,计算可得前4个主成分的累积贡献率已达到83.20%,符合主成分分析累积贡献率> 80%的要求[27]。说明这4个主成分可以包含29种铁皮石斛发酵物品质评价的主要信息。将4个主成分以及各主成分对应的方差贡献率(表2)作为权重,得到综合评价函数:Y=0.328 13Y1+0.198 24Y2+0.169 73Y3+0.135 89Y4,菌株综合评分见表3(仅列出前15名)。综合得分值最高的发酵菌株为Lcb003,后续以该菌发酵产物进行进一步实验。
表1 主成分的特征值及贡献率
Table 1 Characteristic value and contribution rate of each principal component
成分初始特征值提取载荷平方和旋转载荷平方和总计方差百分比累计/%总计方差百分比累积/%总计方差百分比累积/%12.6332.8132.812.6332.8132.811.9724.6024.6021.5919.8252.641.5919.8252.641.6921.0945.6931.3616.9769.611.3616.9769.611.5118.9264.6141.0913.5983.201.0913.5983.201.4918.5983.2050.597.4190.6160.405.0495.6570.222.6998.3480.131.66100.00
表2 不同乳酸菌发酵铁皮石斛的载荷矩阵
Table 2 Load matrix of D.officinale fermented by different lactic acid bacteria
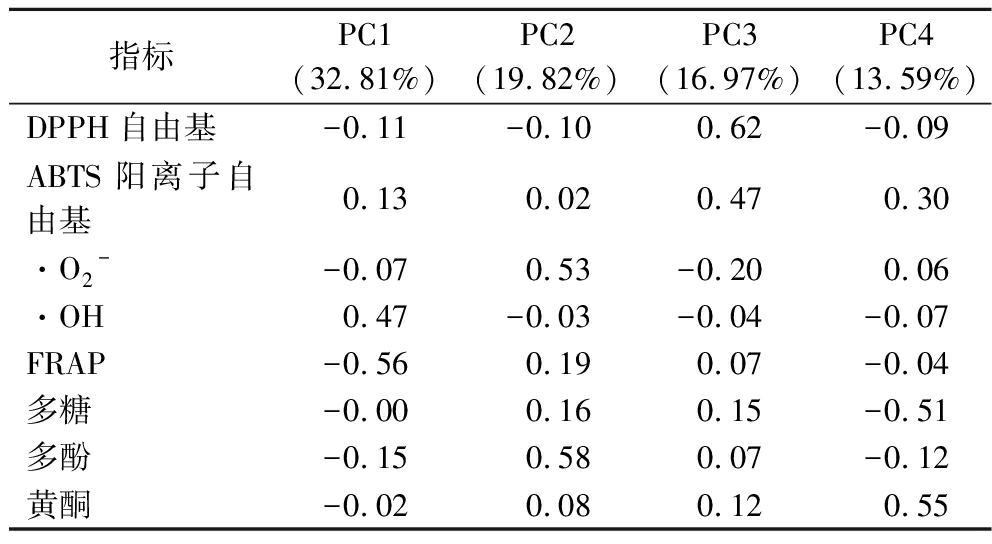
指标PC1(32.81%)PC2(19.82%)PC3(16.97%)PC4(13.59%)DPPH自由基-0.11-0.100.62-0.09ABTS阳离子自由基0.130.020.470.30·O2--0.070.53-0.200.06·OH0.47-0.03-0.04-0.07FRAP-0.560.190.07-0.04多糖-0.000.160.15-0.51多酚-0.150.580.07-0.12黄酮-0.020.080.120.55
表3 不同乳酸菌发酵铁皮石斛综合得分
Table 3 Comprehensive score of D.officinale fermented by different lactic acid bacteria
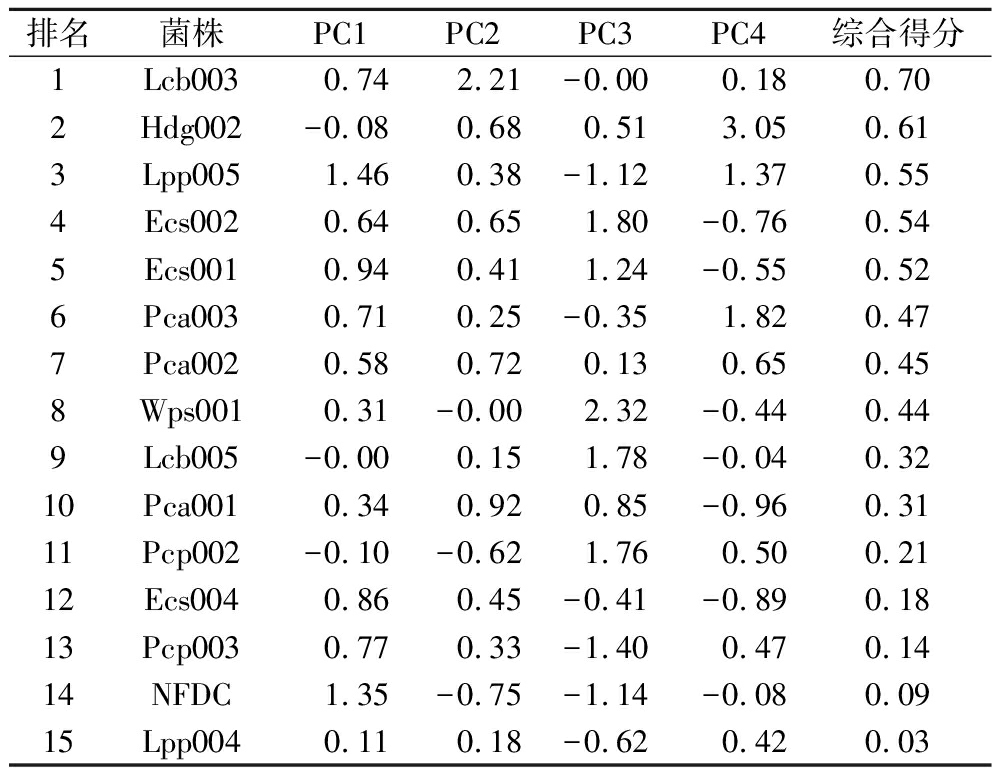
排名菌株PC1PC2PC3PC4综合得分1Lcb003 0.74 2.21-0.00 0.180.702Hdg002-0.080.680.513.050.613Lpp0051.460.38-1.121.370.554Ecs0020.640.651.80-0.760.545Ecs0010.940.411.24-0.550.526Pca0030.710.25-0.351.820.477Pca0020.580.720.130.650.458Wps0010.31-0.002.32-0.440.449Lcb005-0.000.151.78-0.040.3210Pca0010.340.920.85-0.960.3111Pcp002-0.10-0.621.760.500.2112Ecs0040.860.45-0.41-0.890.1813Pcp0030.770.33-1.400.470.1414NFDC1.35-0.75-1.14-0.080.0915Lpp0040.110.18-0.620.420.03
2.4 Lcb003发酵铁皮石斛理化特性
经Lcb003发酵后,铁皮石斛的理化指标变化如表4所示。发酵产物活菌数达到2.27×10⁹CFU/mL,说明该菌株可在单一铁皮石斛培养基中稳定增殖。受乳酸菌代谢影响,体系pH值显著下降,总酸含量相应上升。同时,铁皮石斛浆中的还原糖作为碳源被消耗,其质量浓度从45.50 g/L显著下降至25.71 g/L,降幅达43.5%。
表4 Lcb003对铁皮石斛发酵后理化特性的影响
Table 4 Effect of different strains on physicochemical properties of of D.officinale
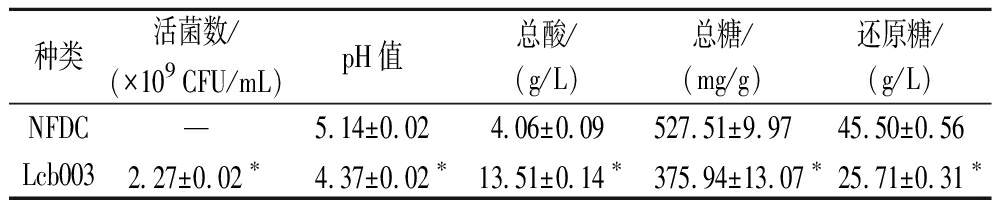
种类活菌数/(×109 CFU/mL)pH值总酸/(g/L)总糖/(mg/g)还原糖/(g/L)NFDC—5.14±0.024.06±0.09527.51±9.9745.50±0.56Lcb0032.27±0.02*4.37±0.02*13.51±0.14*375.94±13.07*25.71±0.31*
注:*表示与NFDC相比具有显著差异(P<0.05)。
2.5 FDC细胞抗氧化功效评价
2.5.1 不同浓度H2O2对细胞存活率的影响
HSF是一种常用的原代细胞模型,在皮肤衰老机制、伤后愈合、毒性测试以及日化产品功效评价方面得到广泛应用,本实验采用HSF进行抗氧化细胞水平测试。给予培养细胞一定浓度的H2O2,H2O2可穿过细胞膜与细胞内物质反应生成高活性ROS,使细胞处于氧化应激状态并导致细胞衰老和凋亡[28-29]。图4为不同浓度H2O2对细胞存活率的影响,随着浓度上升,细胞存活率逐渐下降,在900 μmol/L时,HSF细胞存活率为(61.53±5.09)%,接近半数致死浓度,以该浓度进行造模较为适宜[30]。
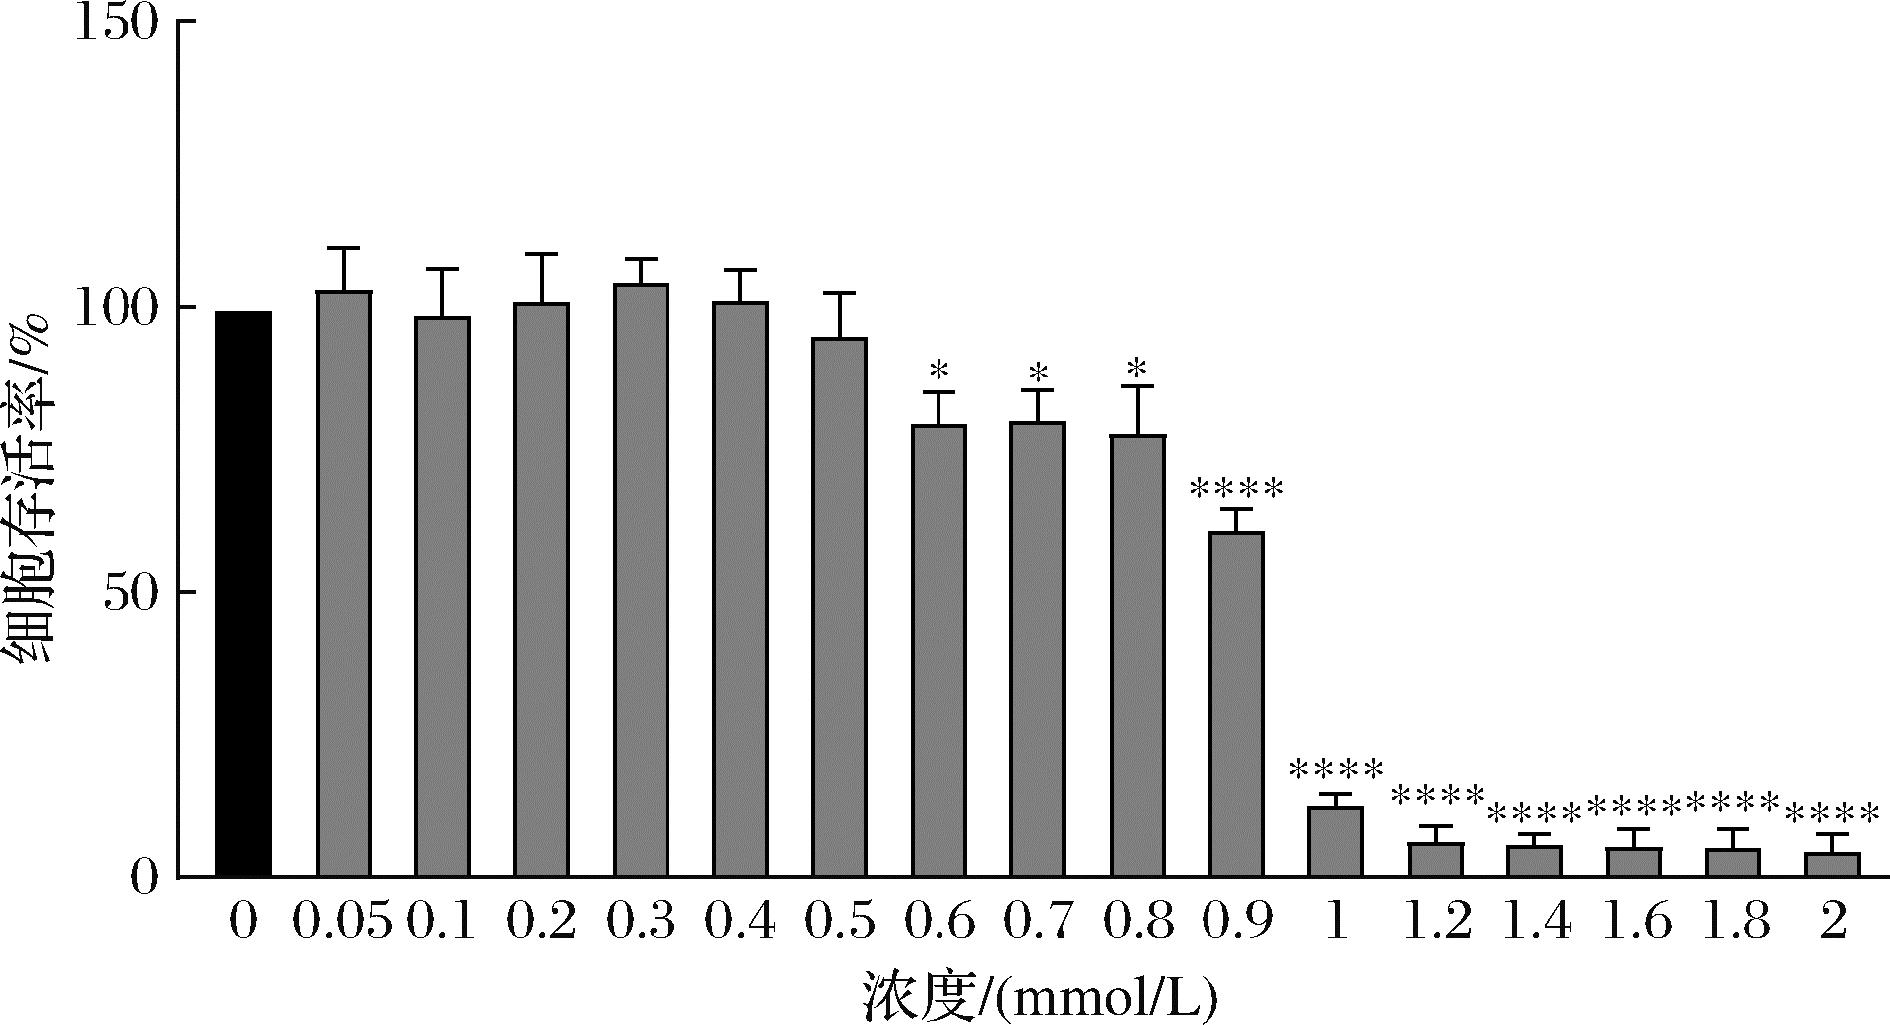
图4 不同浓度H2O2对HSF细胞活力的影响
Fig.4 Effects of different concentrations of H2O2 on HSF cell viability
注:*,P<0.05;****,P<0.000 1 vs 0 mmol/L。
2.5.2 不同菌种发酵样品对细胞存活率的影响
细胞存活率可直接反映细胞的生理状态,存活率越高则表明药物保护细胞抵御氧化损伤的能力越强。本文通过PCA对化学指标进行综合评分,获得了最高评分菌株Lcb003,为验证其细胞水平中的抗氧化活性,从列表中选出了高得分(Hdg002、Lpp005)、中得分(Pca001、NFDC)和低得分(Lcb008、Lcb002)的样品在100 μg/mL进行细胞实验,通过测定细胞存活率来验证PCA结果是否与实际抗氧化功效相一致。实验结果如图5所示,Lcb003组的细胞存活率显著高于各菌种发酵组及NFDC组(P<0.000 1)。结果提示,经由PCA综合评分得出的优势菌株Lcb003在细胞实验中具有更高的抗氧化潜力,因此后续实验只针对Lcb003发酵组进行探讨,并将其命名为FDC。
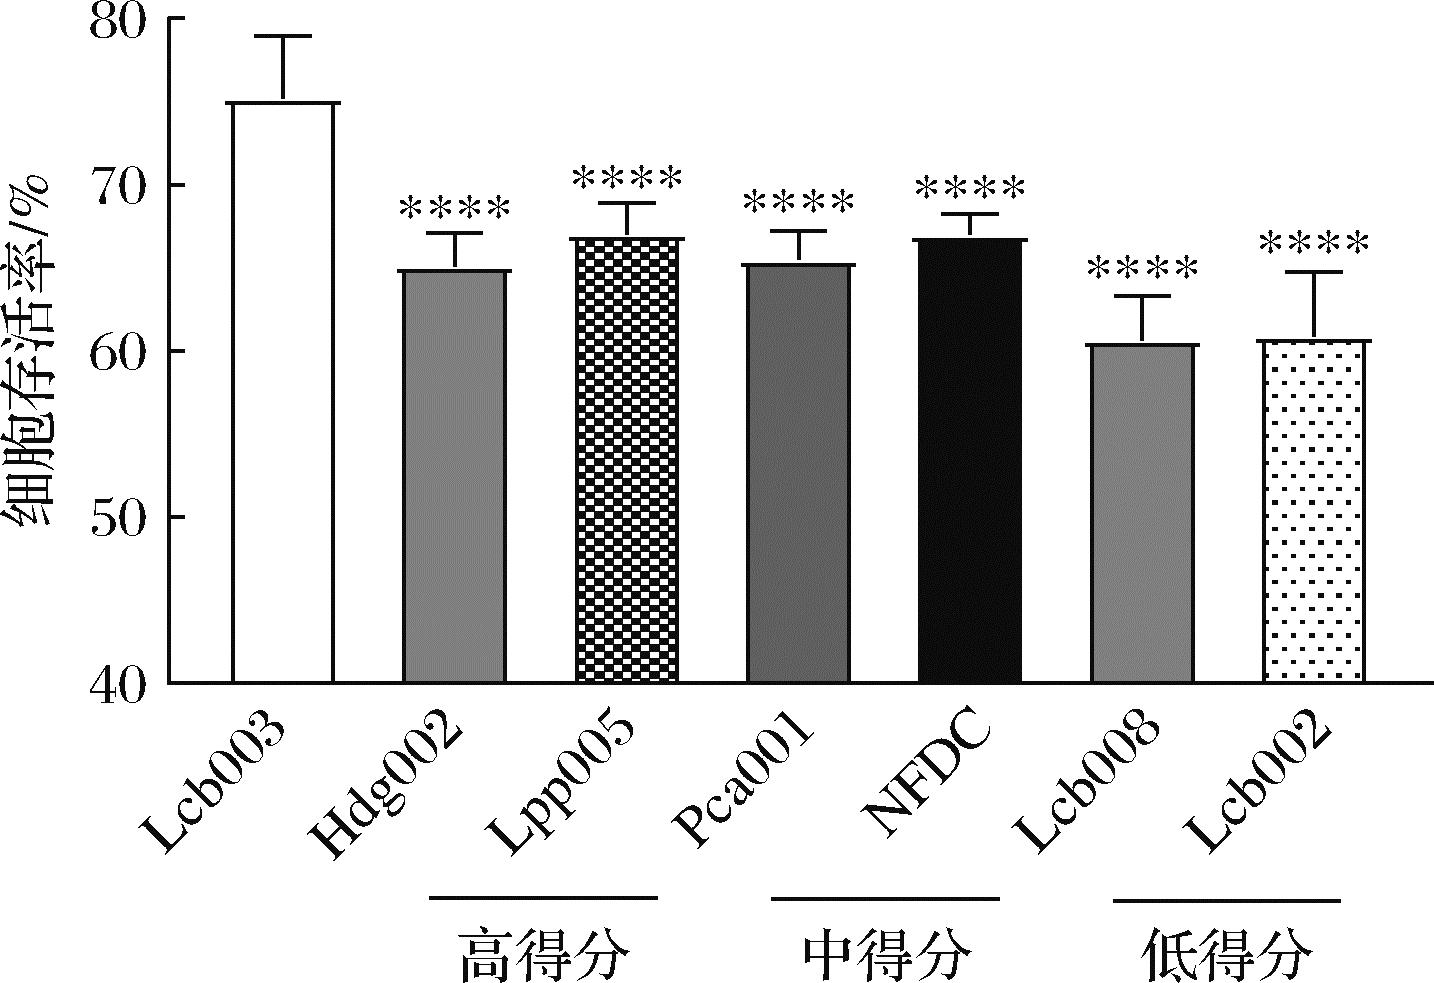
图5 不同样品对HSF细胞存活率的影响
Fig.5 Effects of different substances on cell viability in HSF cells
注:****,P<0.000 1 vs Lcb003。
2.5.3 不同样品对细胞存活率和ROS的影响
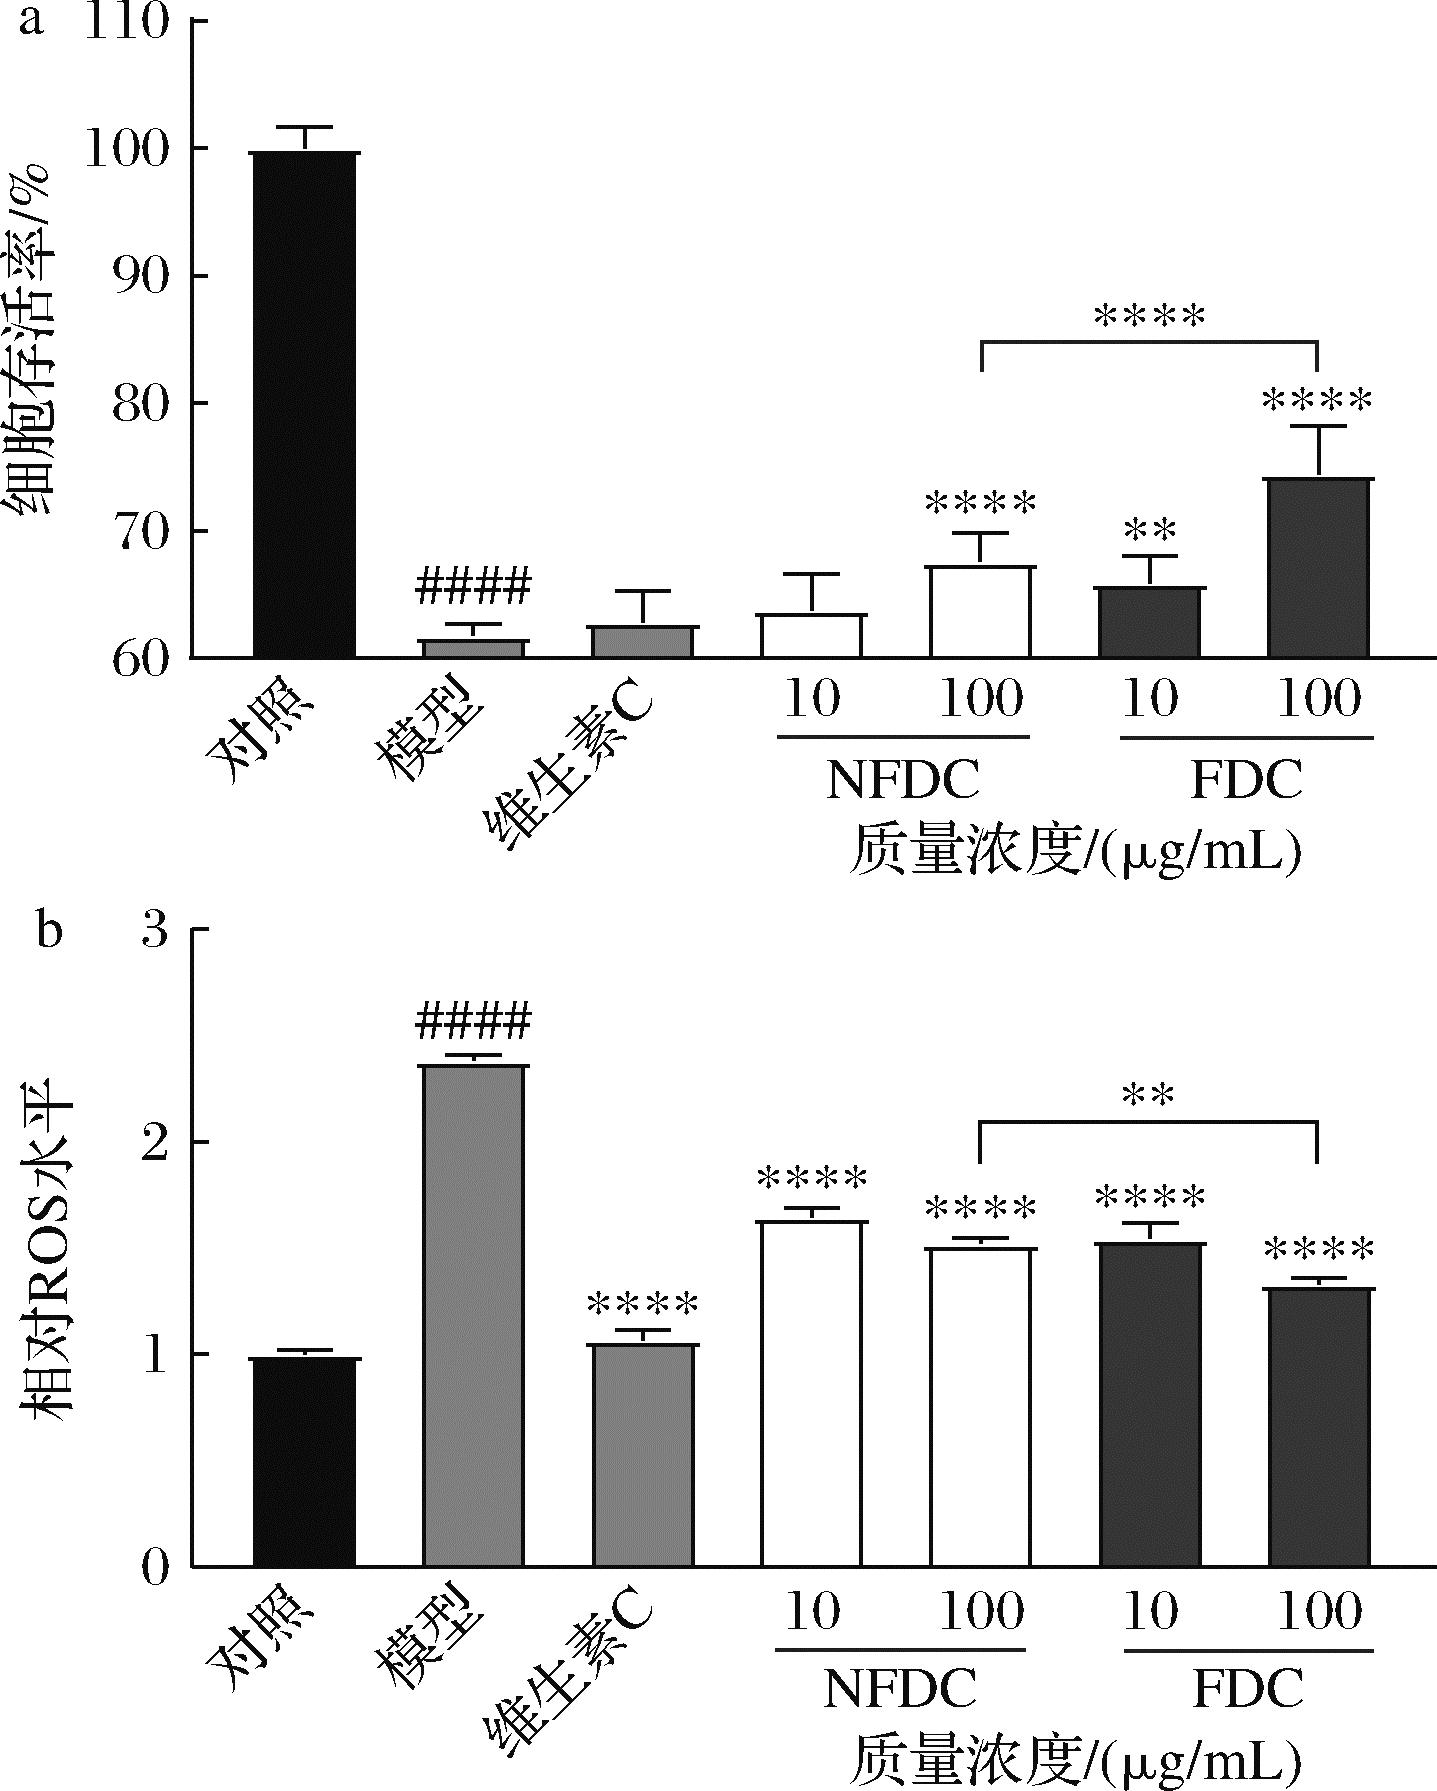
如图6-a所示,与模型组相比,维生素C对细胞的保护作用不明显,高浓度的NFDC和低、高浓度的FDC均能极显著抵御H2O2造成诱导的死亡(P<0.01)。在低浓度时二者无显著性差异,在高浓度下,FDC组细胞存活率[(74.42±3.75)%]显著高于NFDC组[(67.57±2.29)%],提示FDC能够更好地抵御H2O2造成的氧化损伤。
a-细胞存活率;b-相对ROS水平
图6 不同样品对HSF细胞存活率、胞内ROS的影响
Fig.6 Effects of different substances on cell viability and ROS in HSF cells
注:####,P<0.000 1 vs对照;**,P<0.01,****,P<0.000 1 vs模型。
正常生理状态下,细胞内的ROS含量维持在较低水平,参与细胞信号传导、细胞代谢等正常生理活动。当细胞受到外界刺激或细胞内部代谢紊乱时,ROS的生成会增加,引起氧化损伤。因此ROS水平可以直接反映药物效果以及细胞的生理状态[1]。如图6-b所示,经H2O2处理后,细胞内ROS含量显著上升至对照组的2.38倍(P<0.000 1);与模型组相比,维生素C、NFDC和FDC在实验浓度下均可显著降低ROS含量(P<0.000 1),其中NFDC在低浓度和高浓度时,细胞内ROS水平分别下降了30.96%、36.10%,而FDC则分别下降了35.14%和44.21%,但仅高浓度下二者存在显著性差异;维生素C组下降了55.23%,基本与对照组持平。结果说明,发酵前后的铁皮石斛均可以显著降低HSF细胞内的ROS水平,但FDC比NFDC效果更优。
2.5.4 HSF细胞中MDA、SOD、GSH-Px检测结果
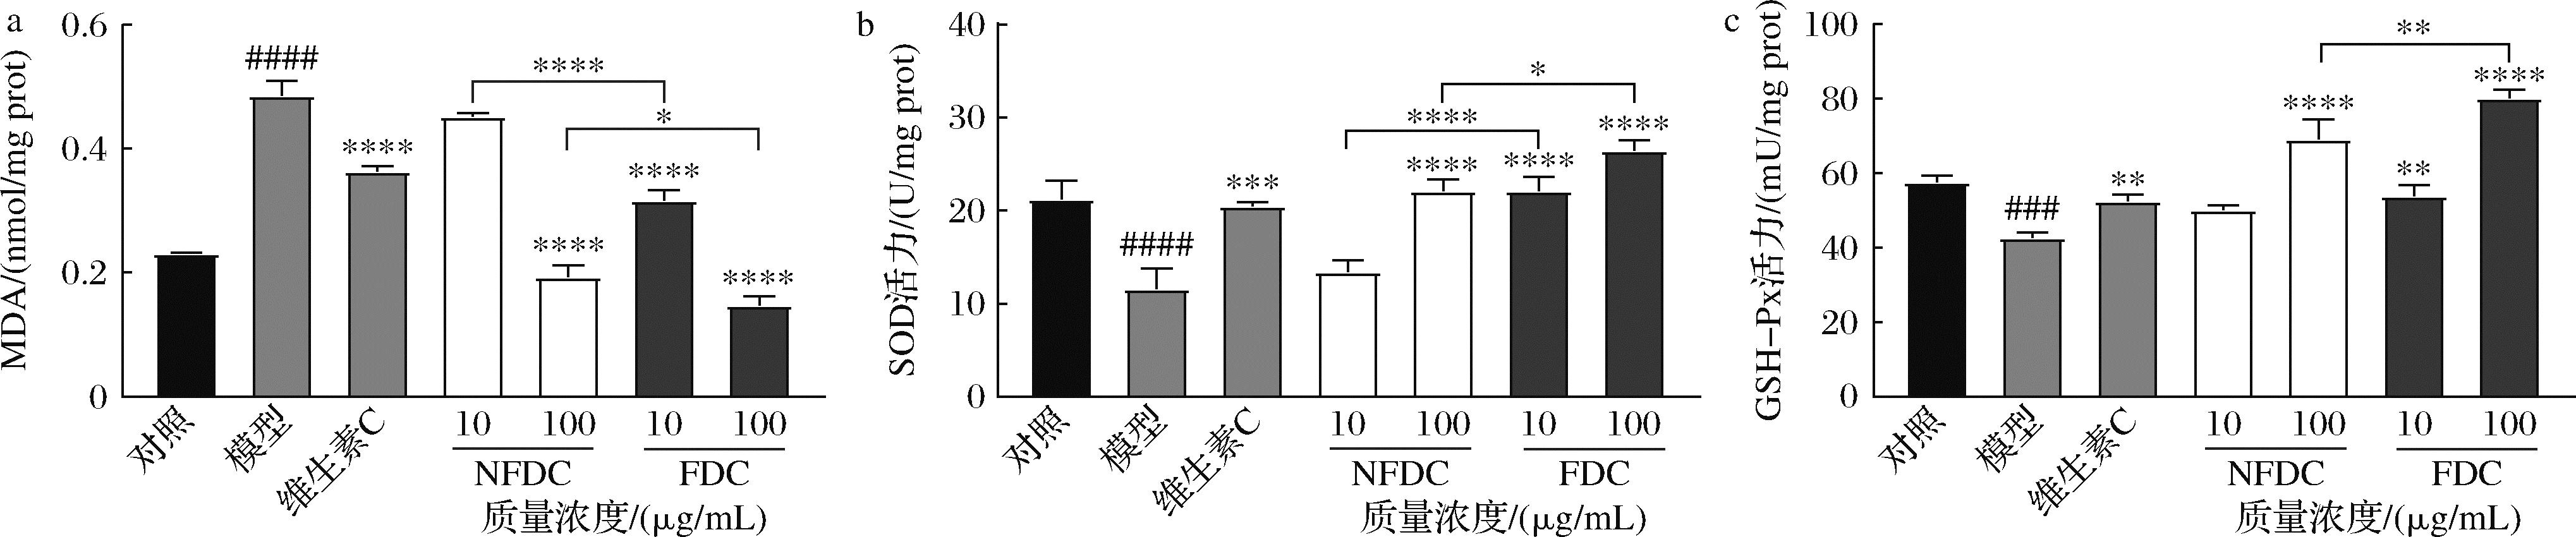
氧化应激状态下,ROS攻击细胞膜多不饱和脂肪酸,诱发脂质过氧化级联反应,产生终产物MDA,因此MDA含量越高,细胞内脂质过氧化反应越剧烈,细胞氧化损伤越严重。如图7-a所示,经H2O2刺激后,胞内MDA水平显著上升至对照组的2.10倍(P<0.000 1)。维生素C、NFDC和FDC的干预均可逆转调胞内MDA水平,具体而言,与模型组相比,NFDC仅在高浓度时显著抑制,细胞内MDA含量下降了60.31%;FDC在低、高浓度时分别显著下调了34.85%和69.71%;维生素C组则显著降低了31.20%,作用效果显著弱于同浓度下的NFDC和更低浓度的FDC。结果提示,铁皮石斛能有效阻断脂质过氧化链式反应,且发酵产物具有更显著的保护作用。
a-MDA含量;b-SOD活力;c-GSH-Px活力
图7 NFDC和FDC对氧化损伤HSF细胞标志物的影响
Fig.7 Effects of NFDC and FDC on content of marker in HSF cells
注:###,P<0.001,####,P<0.000 1 vs对照;*,P<0.05,**,P<0.01,***,P<0.001,****,P<0.000 1vs模型。
细胞内源性抗氧化酶(如SOD、GSH-Px)能够参与清除ROS,维持细胞功能的正常运行[31],因此通过检测这些抗氧化酶活力,可以反映细胞在氧化损伤状态下的抗氧化能力及细胞损伤的严重程度。如图7-b、图7-c所示,对照组SOD和GSH-Px分别为(21.26±2.00)、(57.64±1.66) U/mg prot, 经H2O2处理后,细胞内SOD、GSH-Px活力显著下降,分别降低至对照组的54.63%和74.16%(P<0.001);维生素C、FDC和NFDC均可提升SOD和GSH-Px的活力:在低浓度时,NFDC组中SOD和GSH-Px水平均与模型组无显著差异,而在高浓度时分别显著提升至模型组的1.91、1.62倍;FDC组在低浓度时可将SOD和GSH-Px水平分别提升至模型组的1.90、1.26倍,高浓度时提升至2.37、1.87倍;维生素C组2种酶活性则分别提升至模型组的1.76、1.23倍,作用效果显著低于同浓度下的FDC。上述结果说明,FDC和NFDC可以有效提升SOD、GSH-Px活力,且前者比后者效果更显著。
3 结论
本研究利用主成分分析,以DPPH自由基、ABTS阳离子自由基、·O2-、·OH清除能力、FRAP、总多糖含量、总多酚含量和总黄酮含量为主要指标,对29种铁皮石斛-乳酸菌发酵液进行了综合评价,得到了发酵铁皮石斛的优势菌株乳杆菌Lcb003。进一步对Lcb003发酵前后的铁皮石斛进行了初步的细胞抗氧化评价,研究结果表明,经Lcb003发酵得到的FDC可以显著降低HSF细胞内的ROS和MDA水平,增强抗氧化酶(SOD和GSH-Px)活力,从而提高氧化损伤细胞的存活率。实验结果为铁皮石斛发酵产物在皮肤护理产品和抗氧化食品开发方面提供参考。但本研究仍存在一定的局限性,在后续工作中将对铁皮石斛的发酵工艺进行优化,并进一步在信号通路水平和动物模型上深入研究发酵产物的抗氧化效果和机制。
[1] Halliwell B.Understanding mechanisms of antioxidant action in health and disease[J].Nature Reviews Molecular Cell Biology, 2024, 25(1):13-33.
[2] Wang W S, Zou A Q, Yu Q T, et al.Bioactive polysaccharides from fermented Dendrobium officinale:Structural insights and their role in skin barrier repair[J].Molecules, 2025, 30(13):2875.
[3] Barote A F C, Genelsa E H, Alaba F B J, et al.Potential toxicity of alpha and beta hydroxy acids in cosmetic products:A review[J].International Journal of Research Publication and Reviews, 2022:665-672.
[4] Kostyuk V, Potapovich A, Albuhaydar A R, et al.Natural substances for prevention of skin photoaging:Screening systems in the development of sunscreen and rejuvenation cosmetics[J].Rejuvenation Research, 2018, 21(2):91-101.
[5] Frumuzachi O, Nicolescu A, Mart u G A, et al.Enhancing the phenolic profile and antioxidant activity in corn silk via solid-state fermentation with Aspergillus niger[J].Innovative Food Science &Emerging Technologies, 2025, 105:104239.
[6] Li Y H, Wang W J, Deng Y Y, et al.Antioxidant properties and changes in vitro digestion of the fermented kiwifruit extract prepared by lactic acid bacteria and yeasts[J].Food Chemistry, 2024, 442:138416.
[7] Wang A R, Guan C, Wang T Q, et al.Indole-3-lactic acid, a tryptophan metabolite of Lactiplantibacillus plantarum DPUL-S164, improved intestinal barrier damage by activating AhR and Nrf2 signaling pathways[J].Journal of Agricultural and Food Chemistry, 2023, 71(48):18792-18801.
[8] Qu Q, Ma Y M, Gao X L, et al.Licorice total flavonoids and its gut-enriched Lactobacillus plantarum synergistically activate the Nrf2 pathway to alleviate liver injury[J].Journal of Agricultural and Food Chemistry, 2025, 73(31):19714-19727.
[9] Zhang Z, Wang J L, Hao Y P, et al.Effects of Lactobacillus fermentation on the composition, existing forms, digestive characteristics, and antioxidant activity of polyphenols in three kinds of bean milk[J].Food Bioscience, 2025, 68:106482.
[10] Xu Y Q, Tang Y Q, Liu T, et al.Optimization of rare ginsenosides and antioxidant activity quality of ginseng jiaosu based on probiotic strains and fermentation technology[J].Journal of Food Quality, 2023, 2023(1):5686929.
[11] 林华嗣, 黄庆, 田胜兰, 等.乳酸菌发酵前后铁皮石斛汁中功能活性物质与风味成分的比较[J].现代食品科技, 2023, 39(12):253-261.Lin H S, Huang Q, Tian S L, et al.Comparison of functional active substances and flavor components in Dendrobium officinale juices before and after lactic acid bacteria fermentation[J].Modern Food Science and Technology, 2023, 39(12):253-261.
[12] 蒋丙婷, 李如蕊, 方越, 等.乳酸菌发酵对铁皮石斛抗氧化活性和酚类化合物的影响[J].农业工程学报, 2025, 41(2):328-337.Jiang B T, Li R R, Fang Y, et al.Effects of lactic acid bacteria fermentation on the antioxidant activity and phenolic compounds of Dendrobium officinale[J].Transactions of the Chinese Society of Agricultural Engineering, 2025, 41(2):328-337.
[13] 付燕梦, 邹雅倩, 田星.基于电子舌和HS-SPME-GC-MS技术的不同产地青钱柳茶风味特征及其生物活性成分分析[J].食品工业科技, 2026,47(16):366-380.Fu Y M, Zou Y Q, Tian X.Flavor characterization and bioactive compound analysis of Cyclocarya paliurus tea from different origins using e-tongue combined with HS-SPME-GC-MS[J].Science and Technology of Food Industry,2026,47(16):366-380.
[14] 叶剑, 吴学凤, 穆冬冬, 等.不同乳酸菌发酵对浓缩梨汁营养物质及挥发性风味物质的影响[J].食品工业科技, 2024, 45(23):84-93.Ye J, Wu X F, Mu D D, et al.Influence of different lactic acid bacteria fermentations on the nutritional substance and volatile flavor compounds of concentrated pear juice[J].Science and Technology of Food Industry, 2024, 45(23):84-93.
[15] 周保柱, 洪慧, 张培, 等.不同产地菊花多糖的抗氧化活性研究[J].华西药学杂志, 2019, 34(3):307-310.Zhou B Z, Hong H, Zhang P, et al.Study on the antioxidant activity of polysaccharides of Chrysanthemum from different habitats[J].West China Journal of Pharmaceutical Sciences, 2019, 34(3):307-310.
[16] Plaza-Vinuesa L, S nchez-Arroyo A, Moreno F J, et al.Dual 6Pβ-galactosidase/6Pβ-glucosidase GH1 family for lactose metabolism in the probiotic bacterium Lactiplantibacillus plantarum WCFS1[J].Journal of Agricultural and Food Chemistry, 2023, 71(28):10693-10700.
[17] Zhang D Q, Wang Q, Li Z J, et al.Changing the polyphenol composition and enhancing the enzyme activity of sorghum grain by solid-state fermentation with different microbial strains[J].Journal of the Science of Food and Agriculture, 2024, 104(10):6186-6195.
[18] Shahidi F, Athiyappan K D.Polyphenol-polysaccharide interactions:Molecular mechanisms and potential applications in food systems-a comprehensive review[J].Food Production, Processing and Nutrition, 2025, 7(1):42.
[19] Wang H F, Teng J W, Huang L, et al.Determination of the variations in the metabolic profile and sensory quality of Liupao tea during fermentation through UHPLC-HR-MS metabolomics[J].Food Chemistry, 2023, 404(Pt B):134773.
[20] Liu Y Y, Wang X, Liu M L, et al.Chemical nature of metabolic activation of natural products in traditional Chinese medicines possibly associated with toxicities[J].Acupuncture and Herbal Medicine, 2024, 4(2):184-196.
[21] 王丹, 袁永俊, 谭青云, 等.不同菌种发酵对铁皮石斛多糖及其生物活性的影响[J].中国调味品, 2019, 44(9):39-43.Wang D, Yuan Y J, Tan Q Y, et al.Effects of different strains fermentation on polysaccharide and biological activity of Dendrobium candidium[J].China Condiment, 2019, 44(9):39-43.
[22] Prete R, Alam M K, Perpetuini G, et al.Lactic acid bacteria exopolysaccharides producers:A sustainable tool for functional foods[J].Foods, 2021, 10(7):1653.
[23] Xie D C, Zhang R X, Si D, et al.Promoting proliferation of Lactobacillus plantarum FN107 by Dendrobium oligosaccharide-mediated elimination of carbon catabolite repression[J].Carbohydrate Polymers, 2025, 365:123829.
[24] Ma J J, Wu W Y, Liao J, et al.Preparation of Dendrobium officinale polysaccharide by lactic acid bacterium fermentation and its protective mechanism against alcoholic liver damage in mice[J].Journal of Agricultural and Food Chemistry, 2024, 72(31):17633-17648.
[25] Ng S C W, Furman R, Axelsen P H, et al.Free radical chain reactions and polyunsaturated fatty acids in brain lipids[J].ACS Omega, 2022, 7(29):25337-25345.
[26] Anu O S, Ahmed S, Islam M T, et al.Comparative investigation of free radical scavenging and cyclic voltammetric analyses to evaluate the antioxidant potential of selective green vegetables extracts[J].Scientific Reports, 2025, 15:31919.
[27] 黄宁馨, 丁士勇, 刘睿, 等.主成分分析法优选枸杞乳酸菌发酵饮品发酵剂[J].农业工程学报, 2021, 37(7):286-292.Huang N X, Ding S Y, Liu R, et al.Optimizing lactic acid bacteria starter culture for wolfberry juice fermentation using principal component analysis[J].Transactions of the Chinese Society of Agricultural Engineering 2021, 37(7):286-292.
[28] Imlay J A.The barrier properties of biological membranes dictate how cells experience oxidative stress[J].Molecular Microbiology, 2025, 123(5):454-463.
[29] Muro P, Zhang L, Li S X, et al.The emerging role of oxidative stress in inflammatory bowel disease[J].Frontiers in Endocrinology, 2024, 15:1390351.
[30] Suntornnont N, Kovavisarach A, Tammachote R.Effects of coenzyme Q10 on H2O2-induced oxidative stress of human keratinocytes[J].OBM Genetics, 2025, 9(1):2501279.
[31] 李建喜, 杨志强, 王学智.活性氧自由基在动物机体内的生物学作用[J].动物医学进展, 2006,27(10):33-36.Li J X, Yang Z Q, Wang X Z.Biological function of reactive oxygen free radicals in animals[J].Progress in Veterinary Medicine, 2006,27(10):33-36.