肉色是宰后牛肉品质的核心感官指标之一,其稳定性直接决定消费者的购买意愿与市场价值[1]。目前研究表明,多种因素(pH、氧化应激、肌红蛋白氧化状态、线粒体等)影响宰后肉色的稳定性[2]。
线粒体作为细胞内能量代谢的核心细胞器,通过调控氧气的利用效率、活性氧(reactive oxygen species, ROS)的生成与清除,以及肌红蛋白氧合状态,直接或间接影响肉色的稳定性[3]。目前,线粒体功能对肉色的影响已突破传统能量代谢框架,在氧化应激调节、高铁肌红蛋白还原等方面展现出复杂而精密的调控网络[4]。在氧化应激与抗氧化系统平衡层面,线粒体呼吸链的电子传递过程是ROS生成的关键节点[5]。在高铁肌红蛋白还原机制方面,线粒体通过依赖NADH型高铁肌红蛋白还原酶系统还原高铁肌红蛋白[6]。因此,线粒体功能的动态平衡通过能量代谢、氧化应激调控、高铁肌红蛋白还原等多维机制,协同维持肉色稳定性。
过氧化物酶体增殖物激活受体γ共激活因子1α(peroxisome proliferator-activated receptor γ coactivator 1α,PGC-1α)被认为是线粒体生物发生和功能的主要调节因子[7]。它能够调节线粒体的生成、形态变化、能量代谢和钙离子平衡等,这些调控作用使线粒体能有效地参与机体的氧化还原平衡,维持细胞内环境的稳定[8-10]。且PGC-1α还参与调控线粒体呼吸链复合体的活性,促进ATP产生,提高细胞的能量效率[11]。Han等[12]指出PGC-1α有助于维持线粒体稳态和抗氧化能力,保护线粒体免受氧化应激的损伤。此外,PGC-1α作为外部生理刺激与线粒体生物反应之间的直接纽带,其表达和活性受应激、运动等多种细胞外刺激诱导及AMP依赖蛋白激酶(AMP-activated protein kinase,AMPK)、沉默信息调节因子1(silent information regulator 1,SIRT1)等信号通路的调控。有研究表明,H2O2可作为外源刺激诱导AMPK表达间接上调PGC-1α表达,改善线粒体功能,维持细胞稳态[13]。尽管PGC-1α已被证实能够缓解ROS积累及维持线粒体功能,但其能否在牛宰后肌肉能量代谢水平减弱,ROS平衡失调的特殊氧化应激环境中通过维持线粒体功能稳定来延缓肌红蛋白氧化机制尚不清楚。
本研究通过H2O2及SR-18292干预PGC-1α表达。通过测定L*、a*、b*、肌红蛋白氧合状态、高铁肌红蛋白还原酶(metmyoglobin reductase activity,MRA)、内源性抗氧化酶及线粒体电子传递链复合物Ⅰ~Ⅳ及PGC-1α、AMPK表达量等指标。探究PGC-1α对宰后牛肉肉色的潜在影响,从而为防止牛肉肉色劣变提供新策略。
1 材料与方法
1.1 肉类样本采集与预处理
从同一牧场挑选平均年龄1~2岁、平均体质量(350±20) kg、饲养条件相同、健康无病害的12头黄牛(n=12),这些牛在商业肉类加工厂(甘肃伊牧兰肉类加工有限公司)进行屠宰。屠宰程序符合GB/T 19477—2018《畜禽屠宰操作规程 牛》要求,包括动物福利和条件。屠宰后立即用灭菌刀取下右侧背最长肌,剔除可见脂肪与结缔组织后,将来自每头牛的试验样本切割成100 g、3 cm左右厚的饼状并随机分成3组,然后进行试剂注射处理。第1组:注射质量分数为0.9%的NaCl作为对照组(CK),第2组:注射300 μmol/L H2O2作为激活组(H)。第3组:注射300 μmol/L H2O2+10 μmol/L SR-18292作为阻断组(H-SR)。注射比例均为20∶1(肉∶液,g∶mL)。注射比例及浓度是根据预实验结果确定的。取宰后2 h的未处理肉样置于液氮中作为0 h样本,将其余样品贮藏在4 ℃下成熟6、12、24、48、72 h,在每个贮藏时间结束后收集样品,立即测定样本的pH值、L*、a*、b*。部分样品液氮冻存,用于其余相关指标测定。
1.2 仪器与试剂
CR-400便携式色差仪,日本Konica Minolta公司;便携式pH计,上海玖荣实业有限公司;HWS26电热恒温水浴锅,上海一恒科技有限公司;BP121S电子天平,德国赛多利斯集团。FSH-2A高速均质机,常州越新仪器制造有限公司;722N可见分光光度计,上海仪电有限公司;Spectramax M酶标仪,美国美谷分子仪器有限公司;H-1750R高速冷冻离心机,湖南湘仪实验室仪器有限公司。
SR-8292,麦克林化学试剂有限公司;超氧化物歧化酶(superoxide dismutase,SOD)、过氧化氢酶(catalase, CAT)、谷胱甘肽过氧化物酶(glutathione peroxidase,GSH-Px)、NADH、线粒体复合物Ⅰ~Ⅳ、组织线粒体提取、线粒体膜电位检试剂盒,索莱宝科技有限公司;MRA检测试剂盒,上海晶抗生物工程有限公司;其他试剂均为分析纯。
1.3 实验方法
1.3.1 肉色相关指标测定
1.3.1.1 L*、a*、b*值
使用色差仪测定。测量前,使用标准白色陶瓷砖校准并预热30 min。在6、12、24、48、72 h的成熟期结束时切除表层3 mm左右肉样,在空气中暴露5 min后,测量肉样切面的L*、a*和b*值。在每个样本的切面随机选取3个位置进行测量,取平均值。
1.3.1.2 pH值
使用pH计进行测定。使用前用标准溶液校准pH计。pH计用去离子水冲洗干净后,随机选择肉块3个不连续的位置,沿着肌肉纤维方向将pH计的头部缓慢插入,待读数稳定后记录每个成熟时间的pH值,pH值为3次读数的平均值。
1.3.1.3 肌红蛋白氧化状态
参考Kim等[14]的方法略做修改。称取5.0 g肉样,样品用少量生理盐水冲洗以除去残余血红蛋白的干扰,滤纸吸干多余水分后立即切碎。加入25 mL磷酸缓冲液(40 mmol/L、pH 6.8、4 ℃),1 000 r/min高速均质机匀浆1 min后冰浴静置1 h,离心(3 000×g、4 ℃离心25 min,上清液经滤纸过滤后于450~650 nm波长范围内进行扫描,分析肌红蛋白吸收光谱的变化,同时记录525、545、565、572 nm波长下的吸光值,按照Krzywicki[15]的方法计算氧合肌红蛋白(oxymyoglobin,OMb)和高铁肌红蛋白(metmyoglobin,MMb)的相对含量,计算如公式(1)和公式(2)所示:
OMb/%=(0.882R1-1.267R2+0.809R3-0.361)×100
(1)
MMb/%=(-2.514R1+0.777R2+0.800R3+1.098)×100
(2)
式中:R1为572、525 nm处吸光度的比值;R2为565、525 nm处吸光度的比值;R3为545、525 nm处吸光度的比值。
1.3.1.4 高铁肌红蛋白还原酶活性(metmyoglobin reductase activity,MRA)与NADH含量
采用市售试剂盒按照说明书测定。
1.3.2 线粒体相关指标测定
1.3.2.1 线粒体提取
参考Zhang等[16]的方法提取线粒体。切取适量肉样,用4 ℃的生理盐水洗去表面残血,滤纸吸干后迅速切取10 g样品,切碎后加入100 mL分离液(250 mmol/L蔗糖、10 mmol/L Tris-HCl、1 mmol/L EDTA,pH 7.4),在12 000 r/min转速下匀浆2 min,然后1 500×g、4 ℃离心15 min,上清液再次在12 000×g、4 ℃条件下离心20 min,沉淀用分离液清洗2次后溶于缓冲液(250 mmol/L蔗糖、10 mmol/L Tris-HCl,pH 7.4),即为线粒体悬浮液。
1.3.2.2 线粒体活性氧水平
参考Yang等[17]的方法并略作修改。取2 mL线粒体悬浮液加入2 mL缓冲液(含10 mmol/L Tris-HCl缓冲液、0.8 g/L NaCl、0.1 mmol/L EDTA-2 Na、10 mmol/L蔗糖、10 μmol/L DCFH-DA,pH 7.4),混合均匀后调节最大发射波长525 nm,激发波长480 nm,测定成熟前的荧光值。然后37 ℃水浴成熟5 min,测定成熟后的荧光值。活性氧相对含量计算如公式(3)所示:
活性氧相对含量/{荧光值/[min/(mg·L)]}
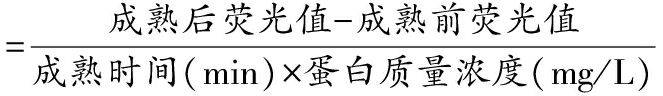
(3)
1.3.2.3 内源性抗氧化酶活测定
SOD、GSH-Px、CAT活性采用市售比色法检测试剂盒测定。取约0.1 g肉样,加入1 mL各自提取液,冰浴匀浆,8 000×g、4 ℃离心10 min,所得上清液放在冰上根据试剂盒的说明进行测定。
1.3.2.4 线粒体复合体Ⅰ-Ⅳ活性测定
称取0.1 g肉样,加入1 mL各自提取液在冰浴中均质,随后4 ℃、600×g离心10 min,弃沉淀留上清液,上清液再次4 ℃、11 000×g离心15 min,所得上清液与沉淀分别放在冰上根据试剂盒的说明进行测定。
1.3.2.5 线粒体膜电位测定(mitochondrial membrane potential,MMP)
使用JC-1试剂盒,按照制造商的说明书测定。使用荧光分光光度计测量荧光。检测单体和聚集体的激发波长分别为490 nm和525 nm,发射波长分别为530 nm和590 nm,线粒体膜的去极化水平可表示为单体激发波长与聚集体激发波长之比。
1.3.3 线粒体相关指标测定
参考Zhu等[18]的方法提取组织样本中蛋白质。取1 g肌肉样本,加入3 mL预冷提取液(25 mmoL/L Tris-HCl,72 mmoL/L EDTA,100 mmoL/L NaCl,2 mmoL/L EGTA,1%TritonX-100,5 mmoL/L NaF,1 mmoL/L),加入DTT,1 mmoL/L PMSF,pH=7.6,高速匀浆,14 000×g、4 ℃条件下离心25 min,上清液为全蛋白提取液。凝胶电泳后,将蛋白转移到PVDF(0.22 μm)上,用封闭液(质量分数5%的脱脂奶粉溶液)在室温、摇床上缓慢摇动状态下封闭1 h,然后加入适量的PGC-1α、AMPK抗体(稀释比为1∶1 000)和ACTIN抗体(稀释比为1∶5 000),在4 ℃反应过夜。将过夜膜取出,放入TBST洗涤箱中,室温洗涤3次,每次10 min。洗去一抗后,加入二抗(1∶3 000)继续成熟60 min (室温、避光缓慢摇动)。最后,用TBST溶液洗膜,放入化学发光成像仪曝光成像,用ImageJ软件对蛋白质印迹条带进行扫描,得到灰度值,目的蛋白灰度值与内参灰度值的比值为目的蛋白相对表达量。
1.3.4 线粒体相关指标测定
参照Yu等[19]的方法测定。使用Trizol试剂(Invitrogen)收集肌肉样品中的总RNA,并使用琼脂糖凝胶电泳验证其完整性。利用SuperScript III (Invitrogen)制备cDNA。RT-PCR反应采用SYBR Green Master Mix(Invitrogen)在StepOne Real-Time PCR系统(Applied Biosystems,USA)上进行。分别用目的基因和内参基因引物扩增样品。条件为:95 ℃初始变性30 s;95 ℃持续15 s,进行40个循环;60 ℃持续30 s。将PGC-1α、AMPK的基因表达与内参基因β-肌动蛋白的基因表达进行比较。所有分析取3个重复的平均值,并使用阴性对照样本进行背景校正。被测基因的相对表达通过2-ΔΔCt方法计算。使用的引物如表1所示。
表1 目的基因引物序列
Table 1 Primer sequence of the target gene
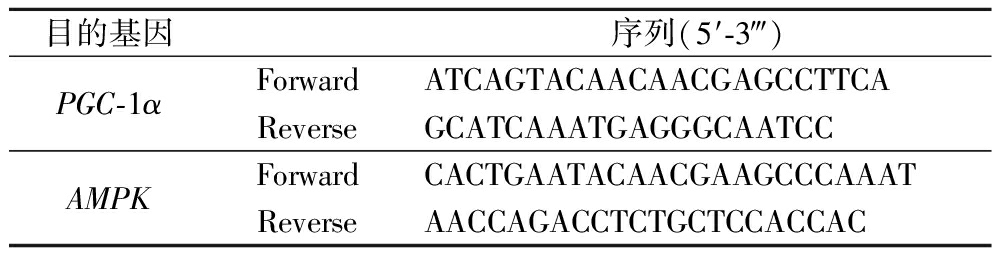
目的基因序列(5'-3‴)PGC-1αForwardATCAGTACAACAACGAGCCTTCAReverseGCATCAAATGAGGGCAATCCAMPKForwardCACTGAATACAACGAAGC-CCAAATReverseAACCAGACCTCTGCTCCACCAC
1.4 数据处理
所有实验指标均重复测量3次,结果表示为“平均值±标准误差”。数据采用SPSS 25.0软件进行单因素方差检验(ANOVA),采用Duncans多重比较验证各指标在不同时间点及不同处理组之间在0.05水平上的差异显著性。使用Origin 2018进行图形绘制及相关性分析。
2 结果与分析
2.1 H2O2诱导PGC-1α对肉色的影响
2.1.1 H2O2诱导PGC-1α对宰后肌肉L*、a*、b*、pH的影响
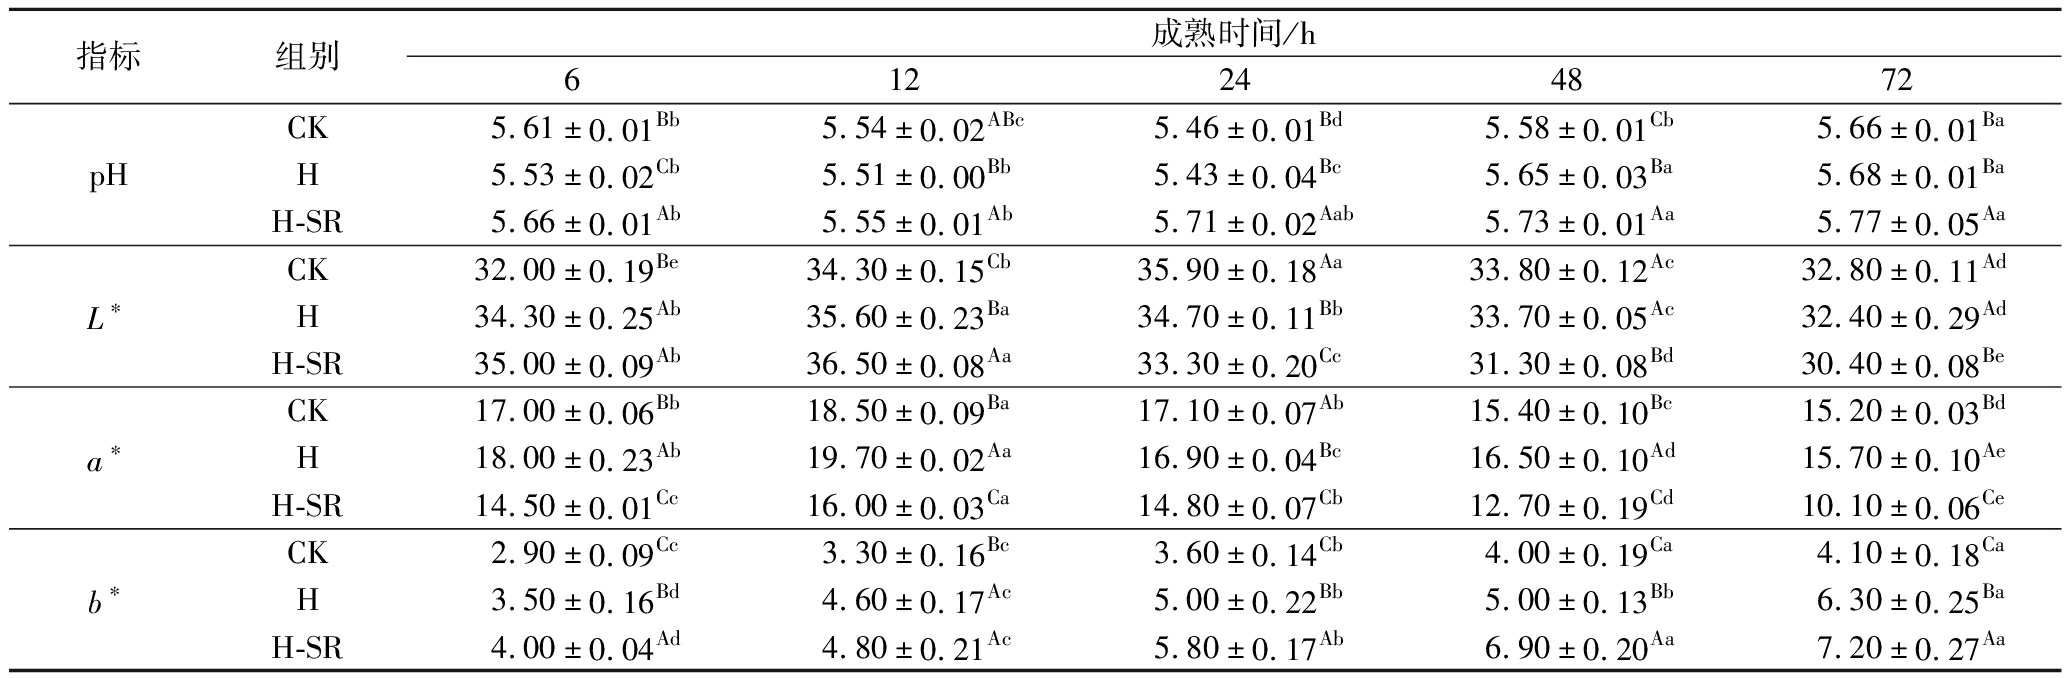
H2O2诱导PGC-1α对宰后牛肉L*、a*、b*与pH的影响如表2所示。3个处理组的pH值均呈先下降后上升趋势。这可能是由于宰后机体缺氧,糖原通过糖酵解途径产生大量乳酸,pH值下降。随着宰后成熟时间延长,糖酵解底物逐渐耗尽,乳酸生成速率减缓,同时肌肉内蛋白质降解产生碱性含氮物,促使pH缓慢回升[20]。值得注意的是,不同处理组的pH回升幅度存在差异(P<0.05)。H组牛肉的pH在72 h时为5.68,显著低于H-SR组(P<0.05),表明激活PGC-1α能够延缓pH回升。这可能是由于激活PGC-1α表达使得氧化磷酸化能力增强,乳酸生成增多,pH减小[21]。
表2 H2O2诱导PGC-1α对牛肉成熟过程中L*、a*、b*和pH值的影响
Table 2 Effects of H2O2-induced PGC-1α on L*, a*, b*, and pH during beef maturation
指标组别成熟时间/h612244872pHCK5.61±0.01Bb5.54±0.02ABc5.46±0.01Bd5.58±0.01Cb5.66±0.01BaH5.53±0.02Cb5.51±0.00Bb5.43±0.04Bc5.65±0.03Ba5.68±0.01BaH-SR5.66±0.01Ab5.55±0.01Ab5.71±0.02Aab5.73±0.01Aa5.77±0.05AaL*CK32.00±0.19Be34.30±0.15Cb35.90±0.18Aa33.80±0.12Ac32.80±0.11AdH34.30±0.25Ab35.60±0.23Ba34.70±0.11Bb33.70±0.05Ac32.40±0.29AdH-SR35.00±0.09Ab36.50±0.08Aa33.30±0.20Cc31.30±0.08Bd30.40±0.08Bea*CK17.00±0.06Bb18.50±0.09Ba17.10±0.07Ab15.40±0.10Bc15.20±0.03BdH18.00±0.23Ab19.70±0.02Aa16.90±0.04Bc16.50±0.10Ad15.70±0.10AeH-SR14.50±0.01Cc16.00±0.03Ca14.80±0.07Cb12.70±0.19Cd10.10±0.06Ceb*CK2.90±0.09Cc3.30±0.16Bc3.60±0.14Cb4.00±0.19Ca4.10±0.18CaH3.50±0.16Bd4.60±0.17Ac5.00±0.22Bb5.00±0.13Bb6.30±0.25BaH-SR4.00±0.04Ad4.80±0.21Ac5.80±0.17Ab6.90±0.20Aa7.20±0.27Aa
注:不同大写字母表示组间显著差异(P<0.05);不同小写字母表示组内显著差异(P<0.05)(下同)。
3组L*均呈先上升后下降的趋势。6~12 h时,H-SR组L*显著高于H组与CK组(P<0.05);12~72 h时,H-SR组与H组L*差异不显著(P>0.05)。表明宰后前期抑制PGC-1α使得L*增大。所有处理组b*均呈现上升趋势,且H-SR组显著高于H组与CK组(P<0.05)。表明抑制PGC-1α会使b*增大。这可能是由于抑制PGC-1α使得肌肉内的脂肪被氧化加剧,b*增大。3组的a*值均呈先增大后减小的趋势,这是由于前期与氧气接触,肌红蛋白氧化形成氧合肌红蛋白(oxymyoglobin,OxyMb),使肉色逐渐转为鲜红色,a*较大,随着成熟时间的延长,ROS大量积累,OxyMb氧化为MetMb,肉色转变为褐色,a*值下降。与CK组相比,6~12 h,H组的a*值显著高于CK组(P<0.05),24~72 h时,H组的a*值显著低于CK组(P<0.05)。表明宰后前期(6~12 h)激活PGC-1α可延缓肉色劣变。H-SR组a*整体显著低于H组与CK组(P<0.05),表明抑制PGC-1α可加速肉色劣变。
2.1.2 H2O2诱导PGC-1α对宰后肌肉肌红蛋白氧化状态的影响
肌肉中肌红蛋白(myoglobin,Mb)的含量和氧化还原状态直接决定了肉的颜色。成熟过程中OxyMb和MetMb的变化呈现此消彼长的关系(图1-a和图1-b)。成熟前期(6~12 h),H-SR组 MetMb 相对含量显著高于H组(P<0.05),表明抑制PGC-1α可以增加MetMb的积累。OxyMb相对含量呈现先上升后下降的趋势,且H组OxyMb相对含量显著高于H-SR组(P<0.05),表明PGC-1α激活能够抑制OxyMb向MetMb转变,使OxyMb相对含量升高,肉色较为鲜红,这与a*变化趋势基本一致。
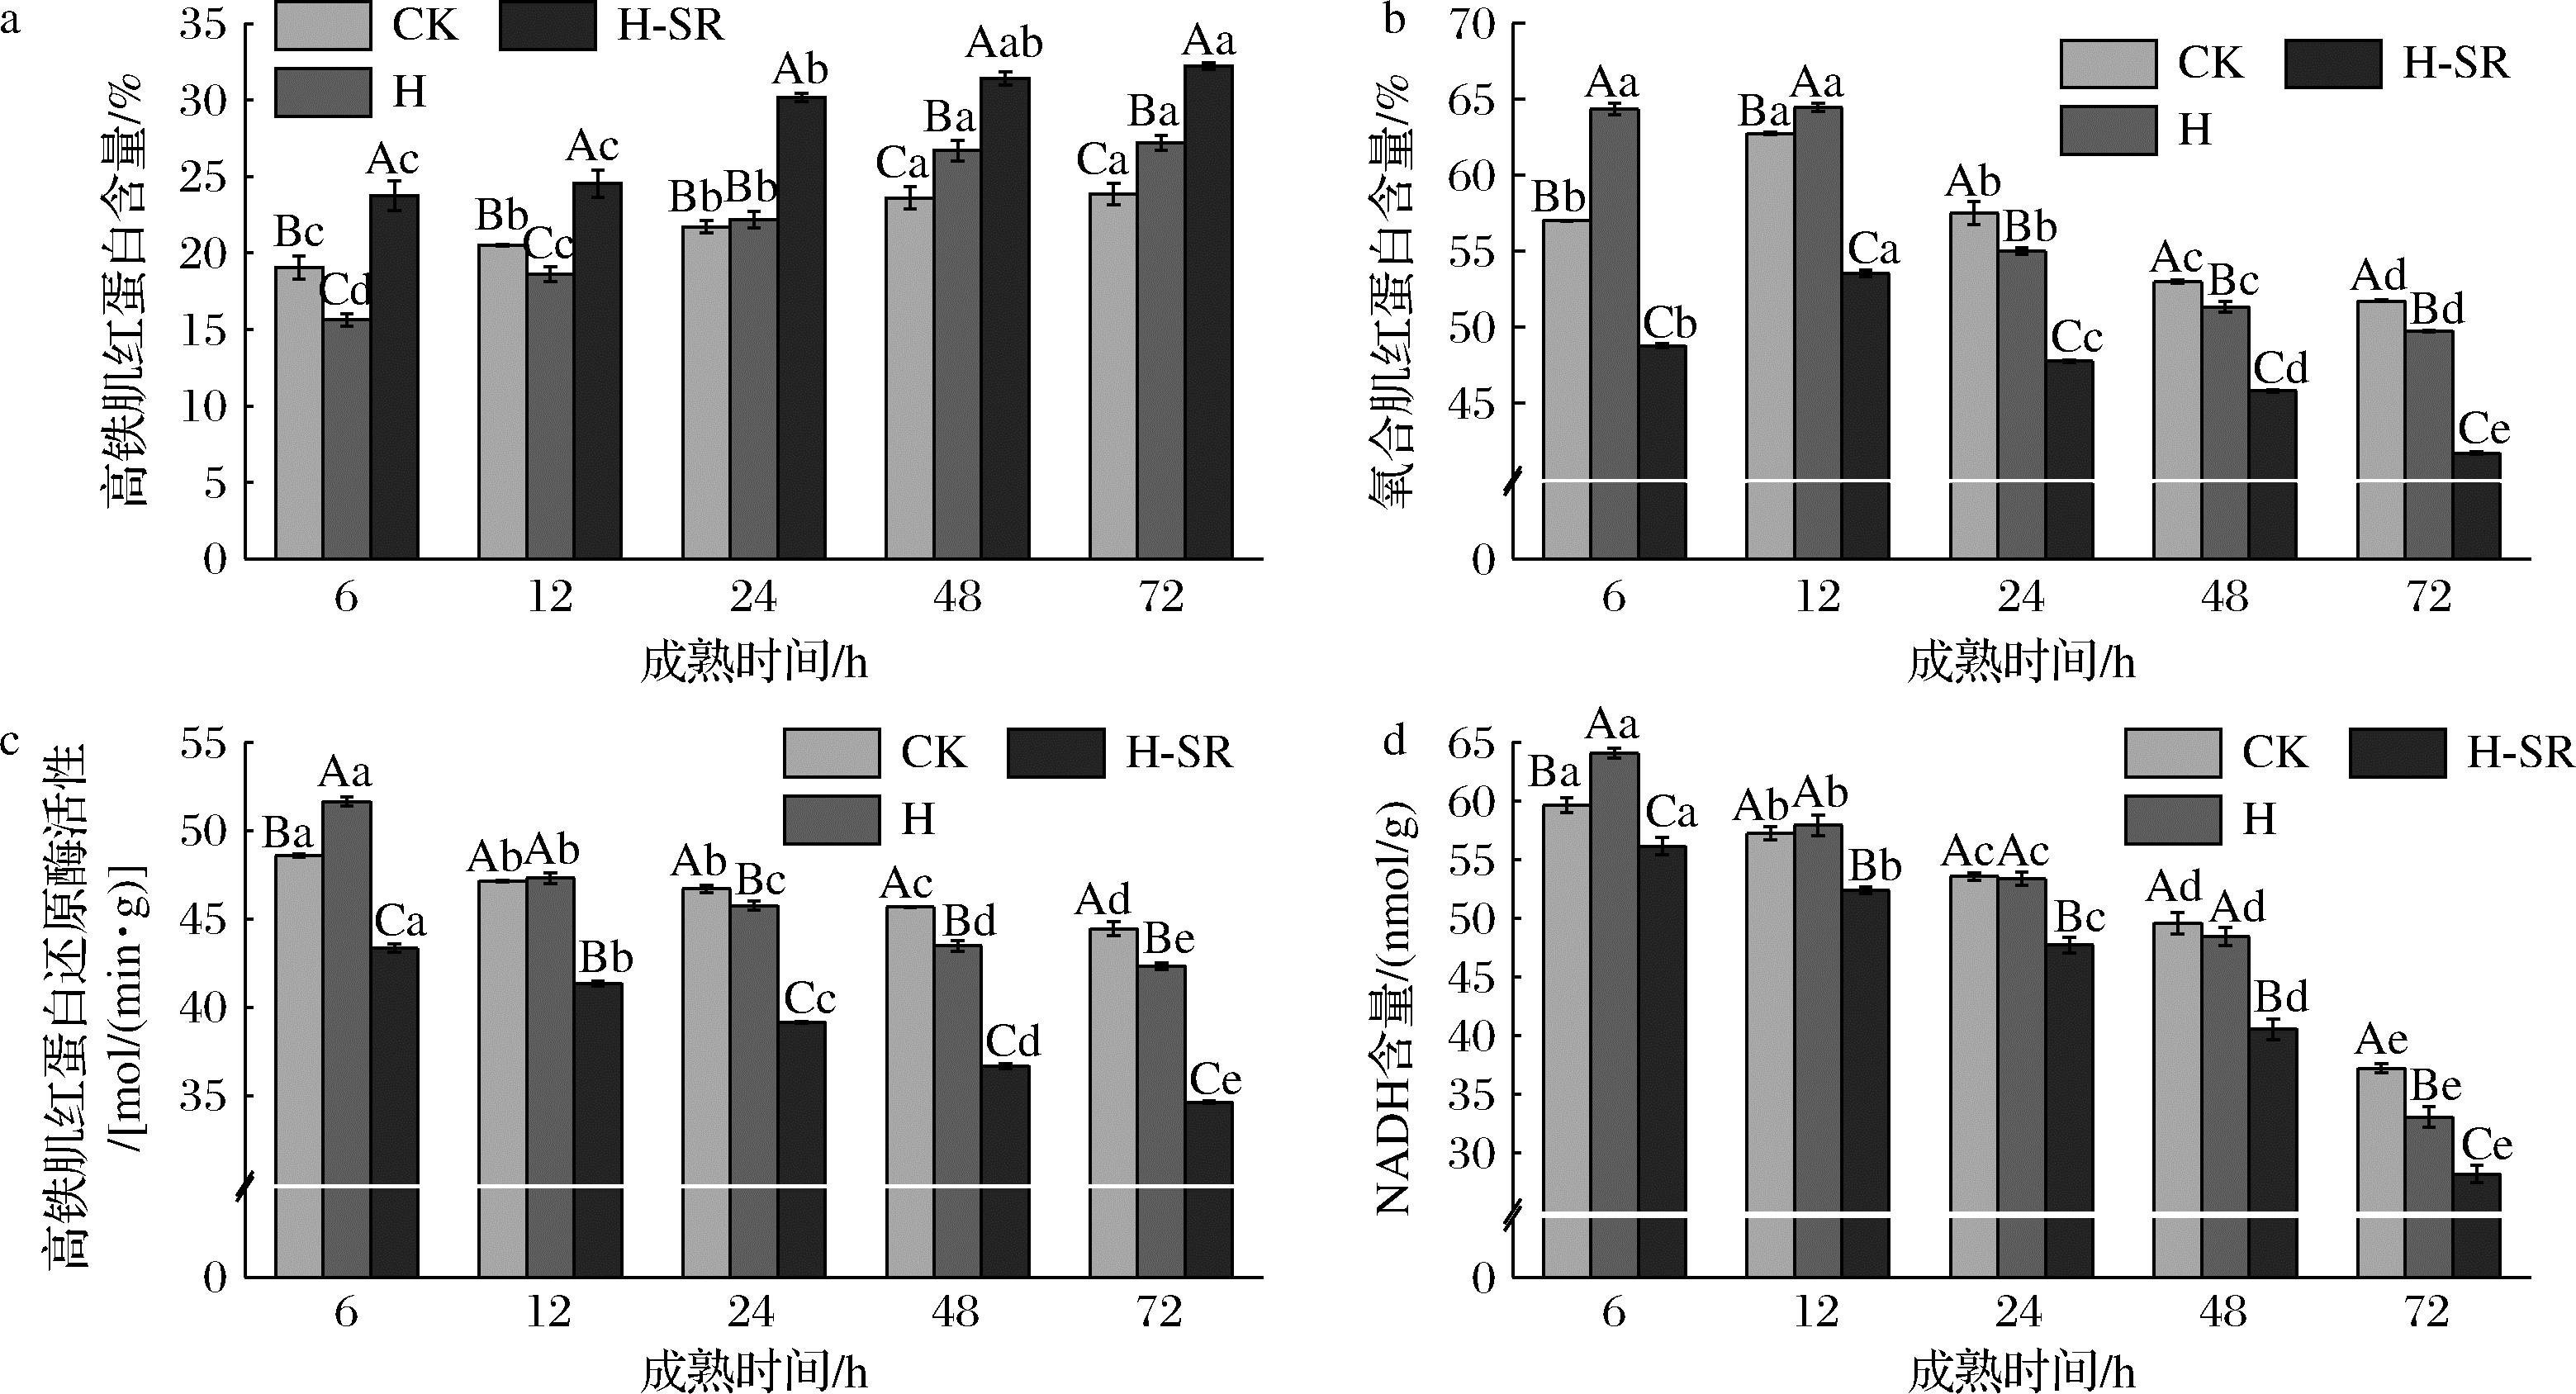
a-高铁肌红蛋白含量;b-氧合肌红蛋白含量;c-高铁肌红蛋白还原酶活性;d-NADH含量
图1 H2O2诱导PGC-1α对宰后肌肉肌红蛋白氧化状态、MRA及NADH含量的影响
Fig.1 Effects of H2O2-induced PGC-1α on postmortem muscle myoglobin oxidation status, MRA and NADH content
注:不同大写字母表示组间显著差异(P<0.05);不同小写字母表示组内显著差异(P<0.05)(下同)。
2.1.3 H2O2诱导PGC-1α对宰后肌肉MRA及NADH的影响
MRA是MetMb酶促还原反应系统中的关键酶。如图1-c所示,MRA活性随成熟时间呈下降趋势,6 h时,MRA活性相对较高,表明肌肉中氧化的肌红蛋白能够及时被还原,从而使 MetMb的积累速率相对较低,这与MetMb相对含量的结果相一致。H-SR组的MRA活性显著低于H组(P<0.05),表明PGC-1α抑制可以降低MRA活性。这可能是PGC-1α抑制造成线粒体功能障碍,加强氧化应激,破坏MetMb还原系统,使MRA活性降低。
NADH作为MetMb还原过程中重要的辅酶,为MetMb提供电子从而促使其还原[22]。如图1-d所示,NADH浓度随成熟时间呈下降趋势,这是由于线粒体结构损伤引起的呼吸作用衰退导致NADH含量显著降低。H-SR组NADH显著低于CK组与H组(P<0.05),表明PGC-1α抑制并减少NADH的含量。在成熟6~12 h,H组的NADH显著高于CK组与H-SR组(P<0.05)。表明宰后前期PGC-1α可促进NADH生成。NADH含量增加为MetMb 酶促还原过程提供辅酶和氢供体,促进MetMb的还原,进而改善肉色[23]。
2.2 H2O2诱导PGC-1α对线粒体功能的影响
2.2.1 H2O2诱导PGC-1α对线粒体活性氧的影响
为明确H2O2诱导PGC-1α对宰后肌肉线粒体ROS的影响,测定线粒体ROS水平(图2-a)。6~72 h时,3组ROS含量均呈上升趋势,这可能是由于随着成熟时间的延长,线粒体功能与活性下降,抗氧化系统失调,造成ROS水平上升。H-SR组的ROS显著高于H组(P<0.05),在72 h时,H-SR组ROS水平较CK组、H组分别显著提高了34.65%、25.35%(P<0.05)。表明抑制PGC-1α表达会显著增加线粒体ROS含量(P<0.05)。这可能是由于抑制PGC-1α表达导致线粒体氧化应激加剧,抗氧化系统失调造成ROS积累。
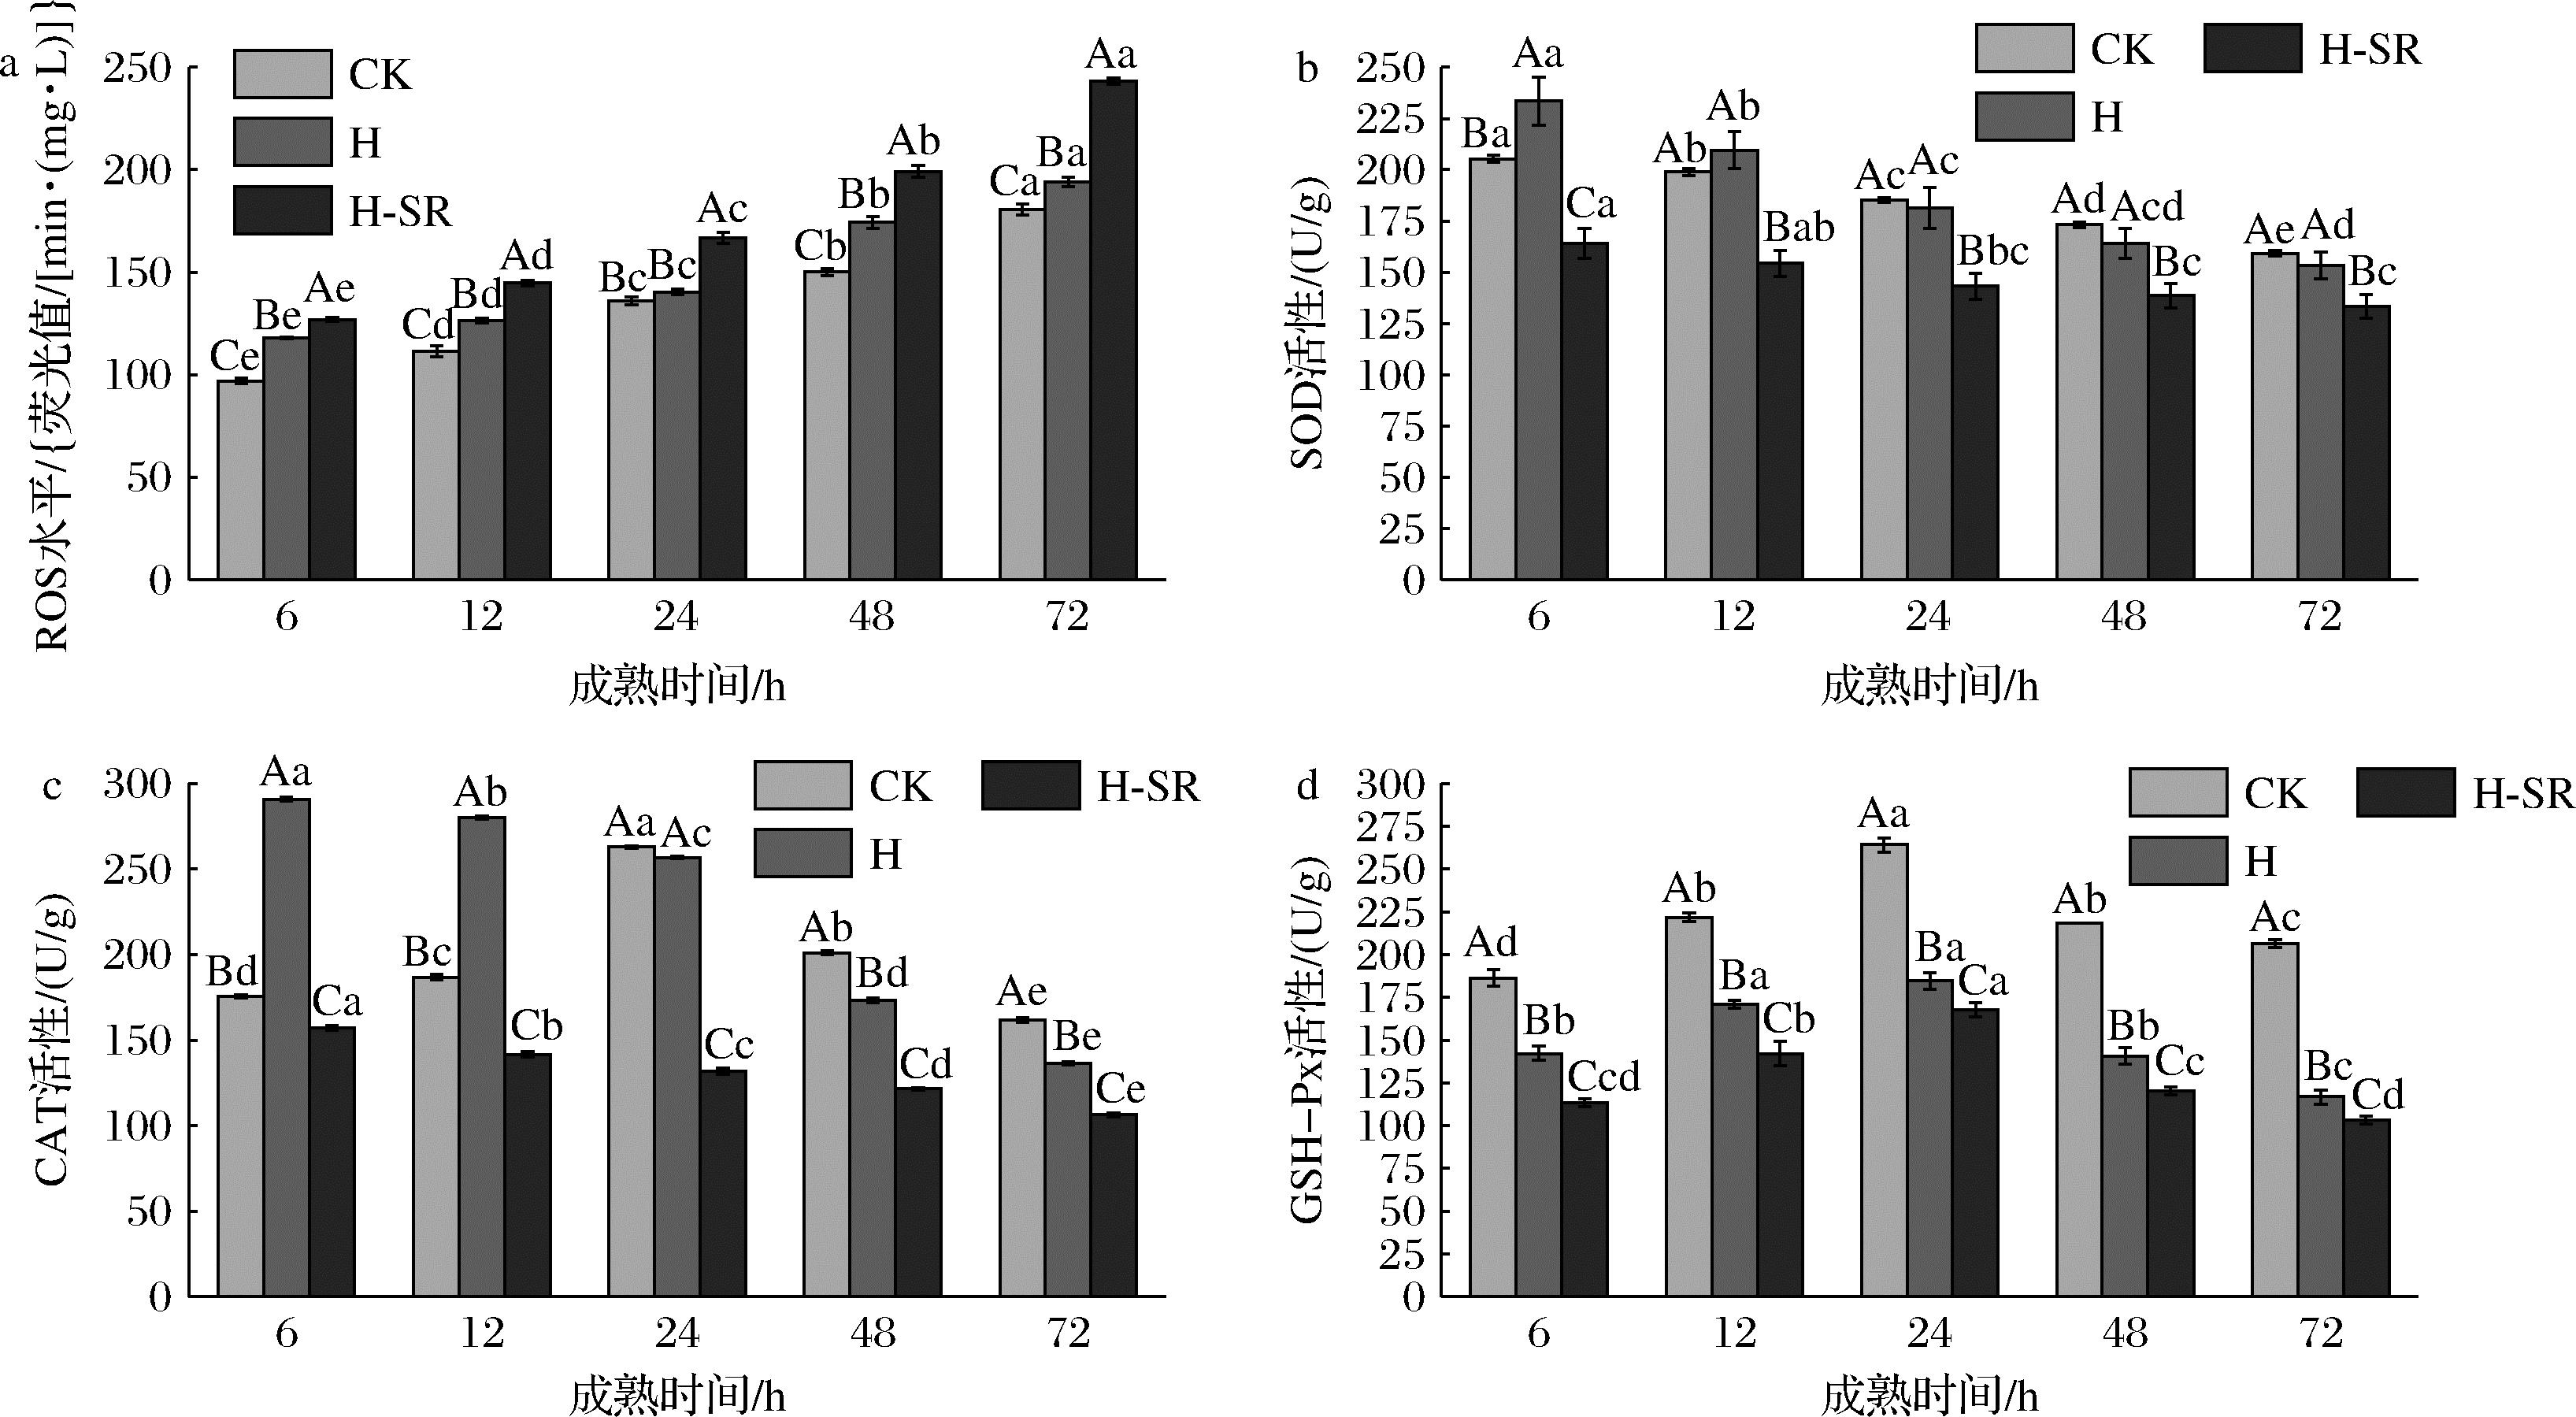
a-ROS水平;b-SOD活性;c-CAT活性;d-GSH-Px活性
图2 H2O2诱导PGC-1α对宰后肌肉线粒体活性氧水平及内源抗氧化酶活性的影响
Fig.2 Effects of H2O2-induced PGC-1α on post-mortem muscle mitochondrial reactive oxygen species levelsand endogenous antioxidant enzyme activity

a-复合物Ⅰ活性;b-复合物Ⅱ活性;c-复合物Ⅲ活性;d-复合物Ⅳ活性
图3 H2O2诱导PGC-1α对宰后肌肉线粒体呼吸链复合物活性的影响
Fig.3 Effect of H2O2-induced PGC-1α on postmortem muscle mitochondrial respiratory chain complex activity
2.2.2 H2O2诱导PGC-1α对宰后肌肉内源性抗氧化酶活性的影响
SOD、GSH-Px及CAT为机体内源性抗氧化物,通常SOD与CAT共同作用。首先,SOD作为催化剂,加速O2-的歧化,使其转化为H2O2和H2O。然后CAT将H2O2分解为H2O和O2。如图2-b所示,SOD活性整体呈现下降趋势。6~12 h时,H组SOD活性显著高于CK组(P<0.05),24~72 h时则相反。在6~72 h,H-SR组的SOD活性显著低于H组和CK组(P<0.05),表明PGC-1α抑制会导致SOD活性下降。如图2-c所示,在6~72 h时,CK组CAT活性呈现先增大后减小的趋势,且在24 h时达到最大值。与CK组相比,6~12 h时,H组CAT活性显著高于CK组。在成熟期间,H组与H-SR组CAT活性均呈下降趋势,且H组CAT活性显著高于H-SR组(P<0.05),表明抑制PGC-1α可加速CAT失活。
GSH-Px作为一类硒蛋白,可以将H2O2和脂质氢过氧化物转化为醇类化合物和H2O。3个处理组GSH-Px活性均呈现增大后减小的趋势呈下降趋势(图2-d)。在24 h时,3组均达到最大活性,此时,H-SR 组GSH-Px活性较H组与CK组分别低12.12%和54.55%,说明抑制PGC-1α能够减弱GSH-Px活性。这些发现共同表明,PGC-1α的抑制会导致ROS过量积累以及内源性抗氧化酶失活。这导致线粒体功能和活性降低,抗氧化防御能力受损。
2.2.3 H2O2诱导PGC-1α对宰后肌肉线粒体复合物活性的影响
线粒体呼吸链复合物活性可直接或间接地反映出线粒体功能,是衡量细胞完整性及功能恢复的指标。线粒体复合物Ⅰ、Ⅱ、Ⅲ、Ⅳ活性随成熟时间呈下降趋势,6~12 h,H组线粒体复合物Ⅰ、Ⅱ、Ⅲ、Ⅳ活性显著高于对照组(P<0.05)(图3),表明激活PGC-1α能够增加线粒体复合物Ⅰ、Ⅱ、Ⅲ、Ⅳ活性。H-SR组线粒体复合物Ⅰ、Ⅱ、Ⅲ、Ⅳ活性显著低于H组(P<0.05),表明抑制PGC-1α能显著增加线粒体呼吸链复合物活性的下降速率。这可能是由于PGC-1α抑制后减弱抗氧化因子活性,增加了ROS的生成与积累,增强了ROS对线粒体电子呼吸链的攻击,从而降低线粒体复合物Ⅰ、Ⅱ、Ⅲ、Ⅳ活性,这与Zhang等[24]的研究结果一致。
2.2.4 H2O2诱导PGC-1α对宰后肌肉线粒体膜电位的影响
线粒体膜电位是反映线粒体功能的关键参数,其稳定性对于保持线粒体完整性至关重要。如表3所示,MMP随着成熟时间的延迟呈现出持续的下降趋势。H-SR处理中的MMP相较CK(P<0.05)显著较低,表明抑制PGC-1α对屠宰后线粒体膜电位稳定性产生负面影响。在宰后早期(6~12 h),H组的MMP显著高于CK和H-SR处理(P<0.05),表明在早期成熟阶段激活PGC-1α对维持线粒体膜稳定性具有潜在保护作用。
表3 H2O2诱导PGC-1α对宰后肌肉线粒体膜电位的影响
Table 3 Effects of H2O2-induced PGC-1α on postmortem muscle mitochondrial membrane potential
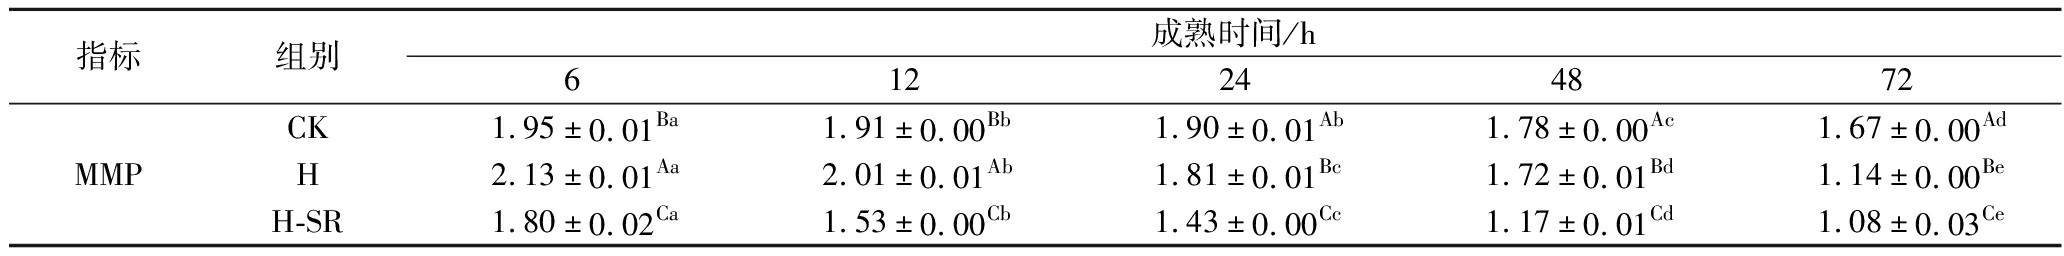
指标组别成熟时间/h612244872MMPCK1.95±0.01Ba1.91±0.00Bb1.90±0.01Ab1.78±0.00Ac1.67±0.00AdH2.13±0.01Aa2.01±0.01Ab1.81±0.01Bc1.72±0.01Bd1.14±0.00BeH-SR1.80±0.02Ca1.53±0.00Cb1.43±0.00Cc1.17±0.01Cd1.08±0.03Ce
2.3 宰后成熟过程中PGC-1α表达的变化
PGC-1α作为多功能转录共激活因子,参与多种生物过程,特别是线粒体生物合成、能量代谢调控和抗氧化反应。此外,PGC-1α对于维持线粒体稳态至关重要[25]。为验证线粒体功能及肉色变化是否通过PGC-1α变化引起,测定不同处理组牛肉成熟过程中PGC-1α mRNA表达水平及蛋白表达水平(图4)。随着成熟时间的延长,H组与CK组PGC-1α mRNA相对表达量整体呈现先上升后下降的趋势,且在12 h达到最大值,PGC-1α mRNA相对表达量较0 h分别提高了63%、52%。在6~12 h,H组PGC-1α mRNA相对表达量高于CK组,24~72 h则相反。表明在宰后前期H2O2激活PGC-1α,从而上调其mRNA相对表达量。这可能是由于H组处理初期适当的H2O2激活AMPK,从而激活了PGC-1α,随着成熟时间的延长,ROS积累过量,机体氧化防御协调失衡,线粒体受到不可逆损伤,PGC-1α表达也随之减小[26]。H-SR组PGC-1α mRNA相对表达量随着成熟时间的延长呈下降趋势,72 h时PGC-1α mRNA相对表达量较0 h降低了51%。表明SR-18292逆转了H2O2对PGC-1α的激活作用,抑制了PGC-1α表达。在0~12 h时,PGC-1α的蛋白相对表达水平H组高于CK组,24~72 h,CK组高于H组(图4-b、图4-c)。变化趋势与PGC-1α mRNA相对表达变化趋势基本一致,表明H2O2对PGC-1α具有时间效应,在6~12 h可以上调PGC-1α表达,且验证了SR-18292对PGC-1α具有明显的抑制作用。
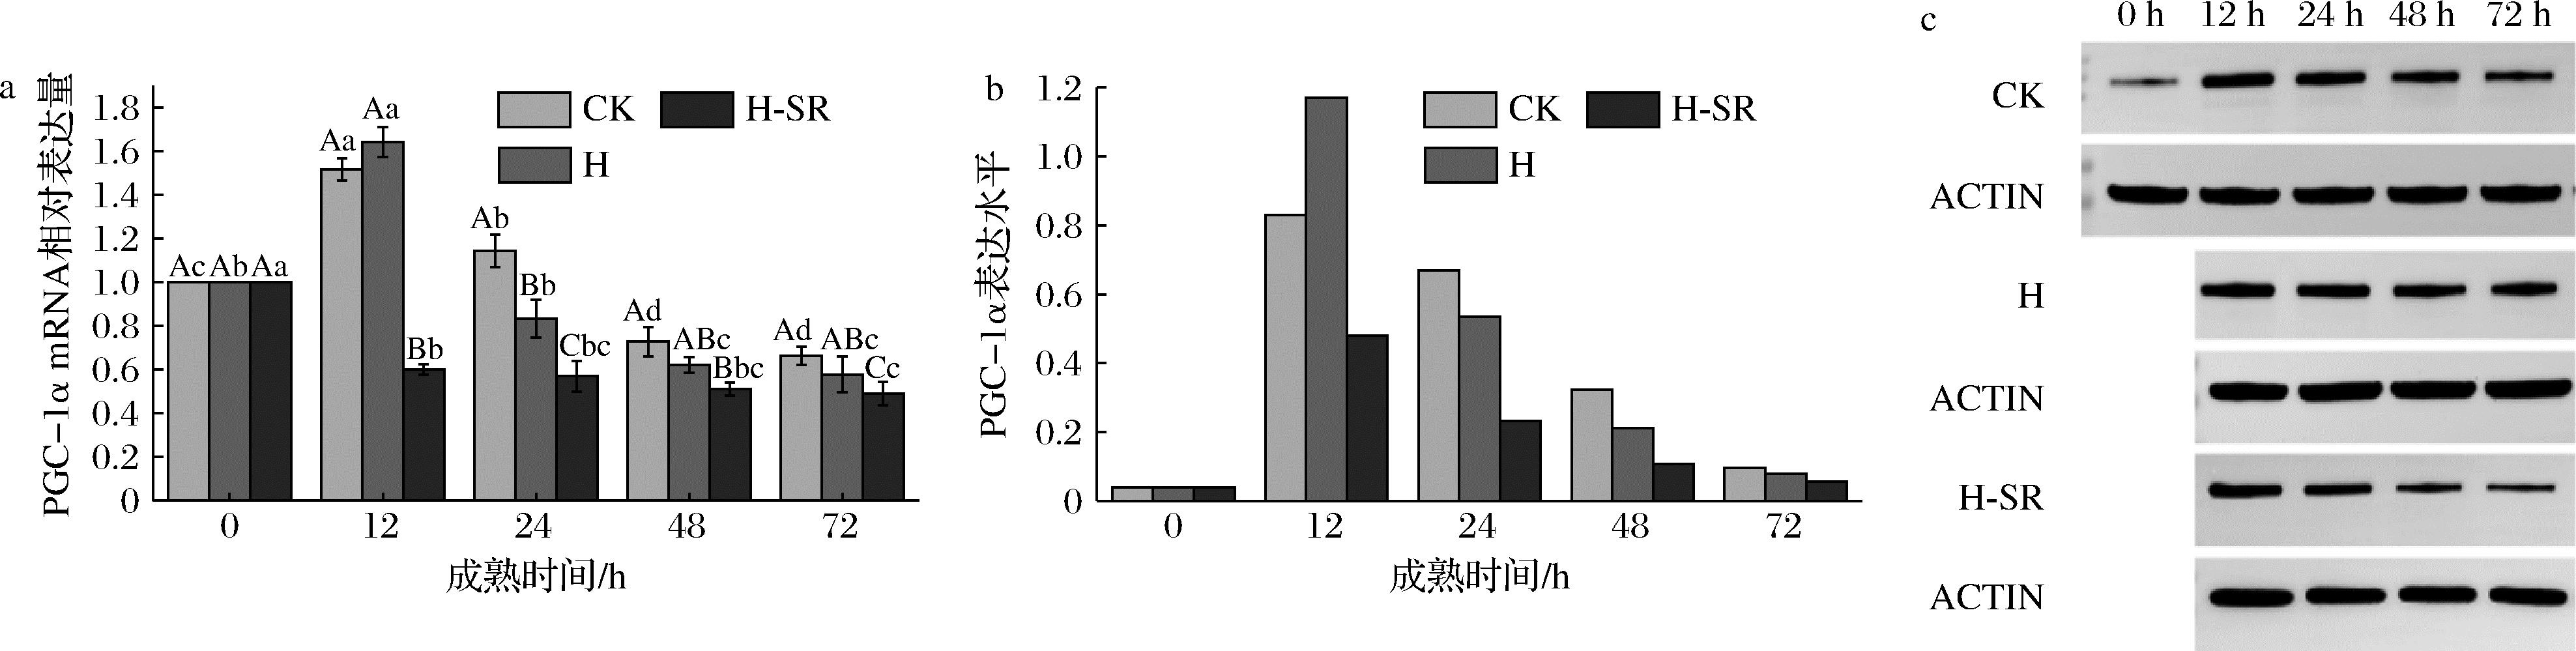
a-PGC-1α mRNA相对表达量;b、c-PGC-1α蛋白条带及定量分析
图4 宰后成熟过程中PGC-1α表达的变化
Fig.4 Changes in PGC-1α expression during postmortem maturation
2.4 宰后成熟过程中AMPK表达的变化
AMPK作为PGC-1α的上游激活因子,研究表明,ROS是AMPK的生理激活剂,AMPK的激活触发PGC-1α依赖的抗氧化反应,限制线粒体ROS的产生[22]。为了进一步验证H2O2通过激活AMPK从而激活PGC-1α,测定不同处理组牛肉成熟过程中AMPK mRNA表达水平及蛋白表达水平(图5)。H组AMPK mRNA表达水平高于CK组,表明H2O2处理激活了AMPK。研究表明,H2O2通过增加AMPK在Thr172位点的磷酸化,使得AMPK活性增加[27-28]。H-SR组AMPK mRNA表达水平低于H组与CK组,这可能是SR-18292抑制了PGC-1α,造成线粒体功能衰退及结构的损害,AMPK被抑制。AMPK蛋白表达变化与其mRNA表达一致,这表明了宰后前期,H2O2通过激活AMPK从而上调PGC-1α表达。
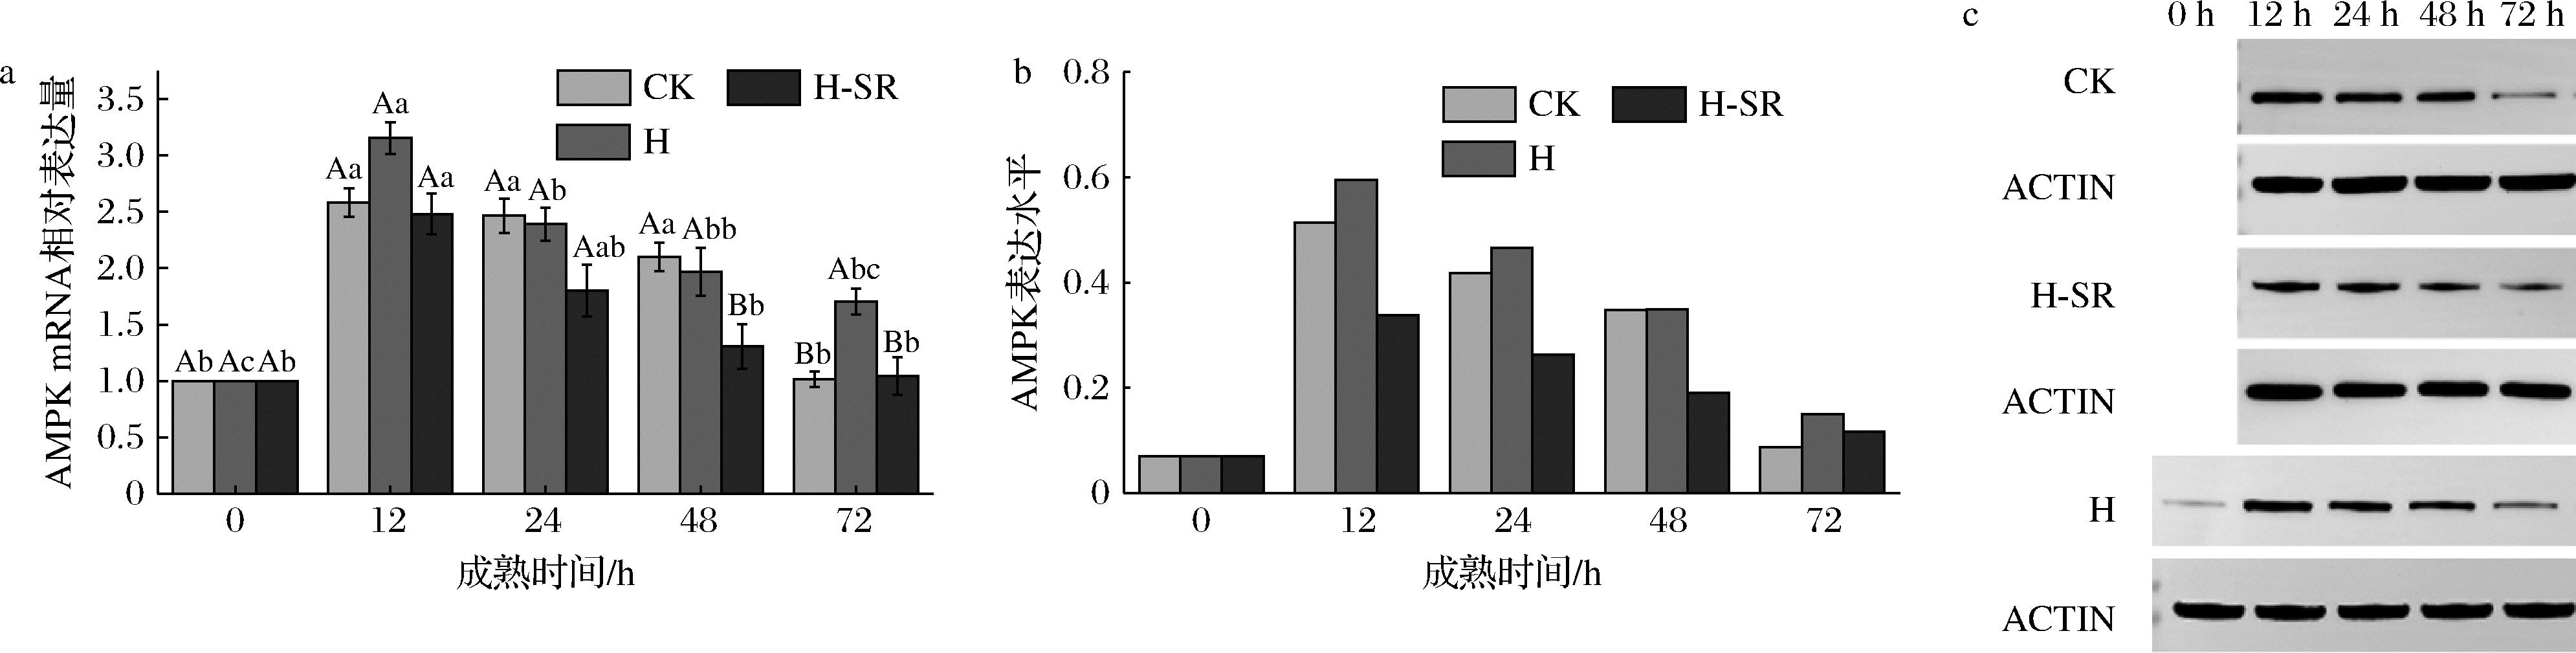
a-AMPK mRNA相对表达量;b、c-AMPK蛋白条带及定量分析
图5 宰后成熟过程中AMPK表达的变化
Fig.5 Changes in AMPK expression during postmortem maturation
3 总结与讨论
本研究旨在探讨H2O2诱导PGC-1α表达对宰后牛肉线粒体功能及肉色稳定性的潜在影响。结果表明,成熟前期(6~12 h),H2O2使得PGC-1α、AMPK表达上调,MetMb的积累减少,a*增大,并且抗氧化酶(SOD、GSH-Px)活性增强,且PGC-1α表达上调增强电子传递链复合物Ⅰ~Ⅳ活性,促进NADH生成及增强MetMb还原酶活性,延缓OxyMb向MetMb转化,延缓肉色褐变。此外,激活PGC-1α可维持线粒体膜电位稳态,进一步优化线粒体代谢效率。本研究明确了PGC-1α通过维持线粒体功能在宰后肉色稳定性中的关键作用,为通过靶向激活PGC-1α改善牛肉色泽稳定性提供了理论依据。未来可进一步探索PGC-1α乙酰化修饰及上下游信号通路在宰后肌肉中的动态调控机制,为肉类加工中氧化应激防控策略开发奠定基础。
[1] Su L Y, Zhao Z R, Xia J L, et al.Protecting meat color:The interplay of betanin red and myoglobin through antioxidation and coloration[J].Food Chemistry, 2024, 442:138410.
[2] 吕锦涛, 舒一梅, 全威, 等.牛肉宰后冷却贮藏期肉色稳定性的变化及其机制[J].食品科学, 2024, 45(14):208-216.Lyu J T, Shu Y M, Quan W, et al.Changes in color stability of beef during postmortem cold storage and underlying mechanism[J].Food Science, 2024, 45(14):208-216.
[3] Zou B, Jia F, Ji L, et al.Effects of mitochondria on postmortem meat quality:Characteristic, isolation, energy metabolism, apoptosis and oxygen consumption[J].Critical Reviews in Food Science and Nutrition, 2024, 64(30):11239-11262.
[4] 吴爽, 罗欣, 毛衍伟, 等.线粒体对肉色及其稳定性影响的研究进展[J].食品科学, 2018, 39(15):247-253.Wu S, Luo X, Mao Y W, et al.A review of the effect of mitochondria on meat color and color stability[J].Food Science, 2018, 39(15):247-253.
[5] Sadri S, Tomar N, Yang C, et al.Effects of ROS pathway inhibitors and NADH and FADH2 linked substrates on mitochondrial bioenergetics and ROS emission in the heart and kidney cortex and outer medulla[J].Archives of Biochemistry and Biophysics, 2023, 744:109690.
[6] 郜娜, 葛玲, 薛洋洋, 等.线粒体介导高铁肌红蛋白还原活性与肉色变化关联性研究进展[J].肉类研究, 2021, 35(3):60-65.Gao N, Ge L, Xue Y Y, et al.Progress in understanding the relationship between mitochondria-mediated metmyoglobin reduction and changes in meat color[J].Meat Research, 2021, 35(3):60-65.
[7] Abu Shelbayeh O, Arroum T, Morris S, et al. PGC-1α is a master regulator of mitochondrial lifecycle and ROS stress response[J]. Antioxidants, 2023, 12(5):1075.
[8] Cruz-Bermúdez A, Laza-Briviesca R, Vicente-Blanco R J, et al.Cisplatin resistance involves a metabolic reprogramming through ROS and PGC-1α in NSCLC which can be overcome by OXPHOS inhibition[J].Free Radical Biology &Medicine, 2019, 135:167-181.
[9] Austin S, St-Pierre J.PGC1α and mitochondrial metabolism:Emerging concepts and relevance in ageing and neurodegenerative disorders[J].Journal of Cell Science, 2012, 125(Pt 21):4963-4971.
[10] Fu X F, Yao K, Du X, et al.PGC-1α regulates the cell cycle through ATP and ROS in CH1 cells[J].Journal of Zhejiang University:Science B, 2016, 17(2):136-146.
[11] Zhou Q, Xu H, Yan L, et al.PGC-1α promotes mitochondrial respiration and biogenesis during the differentiation of hiPSCs into cardiomyocytes[J].Genes &Diseases, 2021, 8(6):891-906.
[12] Han Y S, Lee J H, Lee S H.Fucoidan suppresses mitochondrial dysfunction and cell death against 1-methyl-4-phenylpyridinum-induced neuronal cytotoxicity via regulation of PGC-1α expression[J].Marine Drugs, 2019, 17(9):518.
[13] Irrcher I, Ljubicic V, Hood D A.Interactions between ROS and AMP kinase activity in the regulation of PGC-1alpha transcription in skeletal muscle cells[J].American Journal of Physiology.Cell Physiology, 2009, 296(1):C116-C123.
[14] Kim H W, Choi Y S, Choi J H, et al.Antioxidant effects of soy sauce on color stability and lipid oxidation of raw beef patties during cold storage[J].Meat Science, 2013, 95(3):641-646.
[15] Krzywicki K.The determination of haem pigments in meat[J].Meat Science, 1982, 7(1):29-36.
[16] Zhang J Y, Yu Q L, Han L, et al.Study on the apoptosis mediated by cytochrome c and factors that affect the activation of bovine longissimus muscle during postmortem aging[J].Apoptosis, 2017, 22(6):777-785.
[17] Yang X, Li Y H, Shen R H, et al.New insights into the tenderization pattern of yak meat by ROS-ERS:Promotion of ERS-associated apoptosis through feedback regulation of PERK/IRE1/ATF6 and caspase-12 activity[J].Food Chemistry, 2025, 470:142705.
[18] Zhu X J, Yang C, Yu Q L, et al.Hypoxia-inducible factor-1α promotes ferroptosis by inducing ferritinophagy and promoting lactate production in yak longissimus thoracis et lumborum postmortem[J].Meat Science, 2025, 220:109692.
[19] Yu H C, Bai L, Jin L, et al.SLC25A35 enhances fatty acid oxidation and mitochondrial biogenesis to promote the carcinogenesis and progression of hepatocellular carcinoma by upregulating PGC-1α[J].Cell Communication and Signaling, 2025, 23(1):130.
[20] Li L Y, Zhu Y K, Wang X Y, et al.Effects of different dietary energy and protein levels and sex on growth performance, carcass characteristics and meat quality of F1 Angus × Chinese Xiangxi yellow cattle[J].Journal of Animal Science and Biotechnology, 2014, 5(1):21.
[21] Kim S H, Koh J H, Higashida K, et al.PGC-1α mediates a rapid, exercise-induced downregulation of glycogenolysis in rat skeletal muscle[J].The Journal of Physiology, 2015, 593(3):635-643.
[22] Rabinovitch R C, Samborska B, Faubert B, et al.AMPK maintains cellular metabolic homeostasis through regulation of mitochondrial reactive oxygen species[J].Cell Reports, 2017, 21(1):1-9.
[23] Wu W, Yu Q Q, Fu Y, et al.Towards muscle-specific meat color stability of Chinese Luxi yellow cattle:A proteomic insight into post-mortem storage[J].Journal of Proteomics, 2016, 147:108-118.
[24] Zhang Q, Guo D Q, Wang Y Y, et al.Danqi pill protects against heart failure post-acute myocardial infarction via HIF-1α/PGC-1α mediated glucose metabolism pathway[J].Frontiers in Pharmacology, 2020, 11:458.
[25] Qian L, Zhu Y L, Deng C, et al.Peroxisome proliferator-activated receptor gamma coactivator-1 (PGC-1) family in physiological and pathophysiological process and diseases[J].Signal Transduction and Targeted Therapy, 2024, 9:50.
[26] Liang Z X, Yang Y, Wu X, et al.GAS6/Axl is associated with AMPK activation and attenuates H2O2-induced oxidative stress[J].Apoptosis, 2023, 28(3):485-497.
[27] Agostini F, Bisaglia M, Plotegher N.Linking ROS levels to autophagy:The key role of AMPK[J].Antioxidants, 2023, 12(7):1406.
[28] Choi S L, Kim S J, Lee K T, et al.The regulation of AMP-activated protein kinase by H2O2[J].Biochemical and Biophysical Research Communications, 2001, 287(1):92-97.