随着全球人口持续增长、可持续发展理念深入人心以及饮食结构的转变,植物蛋白的开发与高值化利用已成为食品科学领域的重要研究方向。花生蛋白作为一种优质植物蛋白资源,富含人体所需的8种必需氨基酸(如赖氨酸、苯丙氨酸和异亮氨酸),是精氨酸最丰富的来源之一[1],且抗营养因子含量低,易于消化吸收[2],在替代动物蛋白、满足健康饮食需求方面展现出巨大潜力。然而,花生蛋白的溶解性等功能特性较差[3],在实际应用中面临诸多限制。例如,在蛋白饮料中易出现沉淀分层,在植物奶油中因油水分散难以形成稳定的乳化体系,在植物基蛋白肉产品中因持水性不足导致口感干柴等[4],这些问题严重制约了其在多元化高端食品配方中的应用。
为改善花生蛋白的功能特性,化学改性、物理改性及酶法处理等技术已被广泛研究。其中,脱酰胺处理因其操作简便、改性效果显著而备受关注。脱酰胺反应通过水解蛋白质中的酰胺基团(谷氨酰胺和天冬酰胺),引入羧基以增强蛋白质的亲水性和电荷密度,从而改善其功能特性[5]。根据反应机制不同,脱酰胺方法可分为物理法、化学法与酶法。其中,化学法脱酰胺因其操作简便、处理效率高且成本较低,更适于工业化应用。芦鑫等[6]研究发现酸法脱酰胺可以提高花生蛋白的溶解性,有效改善花生蛋白在酸性和中性溶液中的分散性。Meenmanee等[7]通过加热和盐酸处理组合对椰子蛋白进行脱酰胺,提升了椰子蛋白的溶解度和乳化能力。Frempong等[8]研究表明,碱法脱酰胺能有效降低棉籽蛋白的粒径,提高棉籽蛋白的亲水性和表面疏水性,并改善其溶解性、发泡性和乳化性。Shahid等[9]使用由葡萄糖和柠檬酸制成的天然低共熔溶剂对米渣分离蛋白进行脱酰胺处理,显著提高了米渣分离蛋白的溶解度等功能特性。
然而,现有研究多采用先提取后改性的传统工艺,尤其是酸法脱酰胺需单独进行蛋白提取与改性两个阶段,存在工艺流程复杂、处理周期长、能耗高等问题,增加了生产成本,限制了工业化应用。碱溶酸沉法作为最常用的蛋白提取方法,其碱性环境为脱酰胺反应提供了适宜条件。基于此,本研究在碱溶提取阶段同步实施脱酰胺改性,缩短了处理时间,降低了能耗,为花生蛋白的工业化生产提供了更具经济性的技术方案。本研究系统探讨了pH值、加热温度、加热时间及料液比等关键工艺参数对花生蛋白脱酰胺度和水解度的影响规律,采用响应面优化实验优化脱酰胺工艺参数;深入分析脱酰胺改性对花生蛋白二级结构、微观结构等结构特性的影响机制,进一步评价碱法脱酰胺处理对花生蛋白的溶解性、乳化性、起泡性等功能特性的改善效果,为推动花生蛋白的开发和应用提供理论参考。
1 材料与方法
1.1 材料与试剂
低温花生粕,河南大士有机食品有限公司;牛血清白蛋白,北京索莱宝科技有限公司;丝氨酸、二硫苏糖醇、十二烷基硫酸钠(sodium dodecyl sulfate,SDS)、亚硝基铁氰化钠,上海麦克林生化科技股份有限公司;邻苯二甲醛,上海阿拉丁生化科技股份有限公司;其余试剂均为分析纯。
1.2 仪器与设备
Apreo 2热场发射扫描电子显微镜,赛默飞世尔科技有限公司;Nicolet iS 10傅里叶变换红外光谱仪,美国尼高力仪器公司;Zetasizer Pro纳米粒度电位仪,英国马尔文仪器有限公司;K1100全自动凯氏定氮仪,山东海能科学仪器有限公司;UV-6000紫外分光光度,上海美谱达仪器有限公司;荧光多模式酶标仪,瑞士TECAN贸易有限公司;Lyovac GT1冷冻真空干燥机,德国SRK有限公司;DELTA 320型pH计,梅特勒托利多集团。
1.3 实验方法
1.3.1 基本成分测定
水分含量的测定参考GB 5009.3—2016《食品安全国家标准 食品中水分的测定》;灰分含量的测定参考GB 5009.4—2016《食品安全国家标准食品中灰分的测定》;蛋白质含量使用全自动凯氏定氮仪进行测定。
1.3.2 脱酰胺改性处理
使用高速磨粉机将花生粕粉碎,用石油醚进行脱脂得到脱脂花生粕粉。将脱脂花生粕粉溶于蒸馏水中,用1 mol/L的NaOH溶液调节pH值至碱性,5 000 r/min下离心20 min,取上清液于耐压试管中,油浴加热后立即冷却。
1.3.3 花生蛋白的提取
将脱脂花生粕粉溶液,用1.0 mol/L的NaOH溶液调节pH值为10.6,室温搅拌2 h,4 000 r/min离心20 min,收集上清液,用1.0 mol/L的HCl溶液调节pH值为4.3,静置2 h后, 4 000 r/min离心20 min,收集沉淀,冷冻干燥后得到未改性的花生蛋白(peanut protein,PP),蛋白质含量(86.98±0.84) g/100 g,水分含量(2.76±0.26) g/100 g,灰分含量(3.81±0.35) g/100 g。
脱脂花生粕溶液经脱酰胺改性处理后,用1.0 mol/L 的HCl溶液调节pH值为4.3,静置2 h后,4 000 r/min离心20 min,收集沉淀,冷冻干燥后得到脱酰胺花生蛋白(deamidated peanut protein,DPP),DPP含量(84.98±0.29) g/100 g,水分含量(2.15±0.11) g/100 g,灰分含量(2.05±0.16) g/100 g。
1.3.4 单因素实验
探究加热时间(30、60、90、120、150 min),加热温度(90、100、110、120、130 ℃),pH值(9、10、11、12、13)和料液比(2、3、4、5、6 g/100 mL)对花生蛋白脱酰胺的影响。
1.3.5 响应面优化实验
在单因素实验的基础上,设计Box-Behnken Design响应面实验,自变量为加热时间(A)、加热温度(B)、pH值(C)、料液比(D)4个因素,响应面因素水平见表1。
表1 响应面因素水平表
Table 1 Response surface factor level table
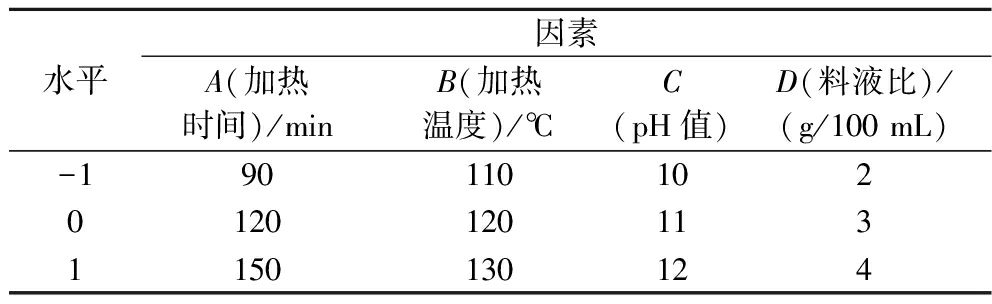
水平因素A(加热时间)/minB(加热温度)/℃C(pH值)D(料液比)/(g/100 mL)-19011010201201201131150130124
1.3.6 评价指标的测定
1.3.6.1 蛋白质提取率的测定
参考高思聪等[10]的方法,用考马斯亮蓝法测定脱酰胺后样品溶液中蛋白质的含量,蛋白质提取率计算如公式(1)所示:
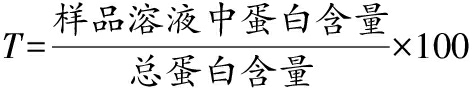
(1)
式中:T,蛋白质提取率,%。
1.3.6.2 水解度的测定
参考Chen等[11]的方法,用邻苯二甲醛(o-phthalaldehyde,OPA)法测定水解度(degree of hydrolysis,DH)。
1.3.6.3 脱酰胺度的测定
参考Zhang等[12]的方法,采用苯酚-次氯酸盐法测定脱酰胺度(deamidation degree,DD)。
1.3.6.4 综合得分
为实现高提取率并得到高脱酰胺度的改性花生蛋白,且有效抑制肽键过度水解,本研究借鉴芦鑫等[6]的方法,并引入T指标,构建了一个综合评分模型以系统优化脱酰胺工艺。该模型以T、DD为正向指标(值越大越优),DH为负向指标(值越小越优),按公式(2)计算综合得分(Y)来确立花生蛋白碱法脱酰胺的最优工艺:
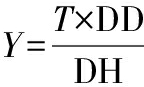
(2)
1.3.7 花生蛋白结构特性的测定
1.3.7.1 二级结构的测定
使用傅里叶变换红外光谱仪测定花生蛋白的二级结构,将花生蛋白研磨粉碎后分别与KBr以1∶100的质量比置于研钵,研磨均匀混合后进行压片。扫描样品并采集光谱图,扫描波长范围为4 000~400 cm-1,扫描次数为32次。
1.3.7.2 微观结构的测定
将花生蛋白黏在载物台的电导胶上,用洗耳球吹去浮粉,经离子溅射喷金后,使用扫描电子显微镜(scanning electron microscopy image,SEM)分别在5 000 和1 0000倍下进行观察和拍摄。
1.3.7.3 SDS-PAGE分析
参考刘立鹏等[13]的方法并稍作修改。将样品溶于样品处理液中,沸水浴5 min后,10 000 r/min离心10 min,取上清液6 μL上样,分离胶质量分数为12%,浓缩胶质量分数为4%,浓缩胶阶段采用恒压模式,电压设置为80 V,待样品进入分离胶后,电压调整为120 V,直至蛋白样品跑完后停止。电泳结束后,用质量浓度1 g/L的考马斯亮蓝(R-250)溶液染色2 h,用甲醇-冰醋酸溶液脱色至蛋白条带清晰,将脱色后的凝胶置于凝胶成像系统中进行成像处理。实验中以双色预染蛋白分子量标准品(雅酶.WJ102,10~250 kDa)作为参考。
1.3.7.4 内源荧光光谱的测定
称取花生蛋白溶解于磷酸盐缓冲液(10 mmol/L,pH 7.0)中,配制0.5 mg/mL的蛋白溶液,使用荧光光谱仪进行测定。激发波长为280 nm,发射波长范围为300~450 nm,激发和发射狭缝宽度均为5 nm,扫描速率为10 nm/s。
1.3.7.5 表面疏水性的测定
参考李春强等[14]的方法,将花生蛋白充分溶解于磷酸盐缓冲液(10 mmol/L,pH 7.0)中,10 000 r/min高速离心30 min除去沉淀物,按质量浓度为0.012 5、0.025、0.05、0.1、0.2、0.4 mg/mL的梯度进行稀释,取2 mL样品与50 μL 8 mmol/L 8-苯胺基萘-1-磺酸充分混合,避光反应2 min,用荧光光谱仪进行测定。激发波长为390 nm,发射波长为470 nm,狭缝宽为5 nm,以样品质量浓度为横坐标,荧光强度为纵坐标绘图,样品表面疏水性由初始斜率表示。
1.3.8 花生蛋白功能特性的测定
1.3.8.1 溶解度
参考崔晨露等[15]的方法,称取100 mg蛋白样品溶于10 mL水中,将蛋白样品溶于蒸馏水中并调节pH值至2~11,充分溶解后8 000 r/min离心20 min,用考马斯亮蓝法测定上清液的蛋白浓度。样品溶解度为上清液的蛋白浓度与总蛋白浓度的比值。
1.3.8.2 起泡性和泡沫稳定性
称取0.2 g蛋白样品加入蒸馏水配制成质量分数为1%的蛋白溶液,置于烧杯中记录溶液高度(L),12 000 r/min高速均质2 min后,分别测量在0 min(L0)和静置30 min(L30)时蛋白溶液的泡沫体积,按公式(3)、公式(4)分别计算起泡性(foaming capacity,FC)与泡沫稳定性(foam stability,FS):
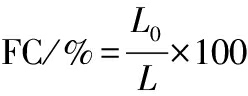
(3)
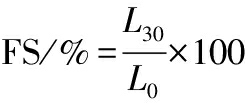
(4)
式中:L,起始溶液的体积,mL;L0,0 min时泡沫的体积,mL;L30,30 min时泡沫的体积,mL。
1.3.8.3 乳化性和乳化稳定性
用蒸馏水配制质量分数为1%的蛋白溶液,取15 mL蛋白溶液与5 mL大豆油混合均匀,使用高速均质机12 000 r/min均质2 min。然后分别在0 min和静置20 min时于烧杯底部取20 μL乳液,用质量分数为0.1%的SDS溶液稀释150倍,通过紫外分光光度计在波长500 nm处测定0 min(A0)和20 min(A20)乳液的吸光度值。通过公式(5)和公式(6)计算乳化性(emulsifying ability index,EAI)和乳化稳定性(emulsifying stability index,ESI):
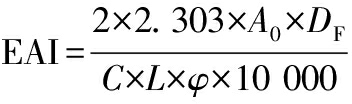
(5)
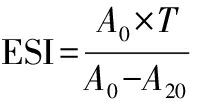
(6)
式中:DF,稀释倍数,150;C,蛋白质质量浓度,g/mL;L,光程,1 cm;φ,油体积分数,0.25;A0,样品0 min时的吸光度值;A20,样品静置20 min时的吸光度值;T,时间,20 min。
1.3.8.4 持水性和持油性
称取0.5 g样品于离心管中,分别加入10 mL的水和10 mL的油,混匀5 min后静置30 min,在5 000 r/min下离心10 min,弃上清液,按公式(7)计算持水性和持油性:
持水性/持油性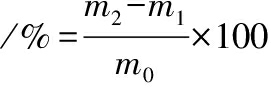
(7)
式中:m0,样品的质量,g;m1,样品和离心管的总质量,g;m2,沉淀和离心管的总质量,g。
1.3.9 粒径和zeta电位的测定
称取1.0 mg样品,用PBS(10 mmol/L,pH 7.0)稀释100倍,使用纳米粒度及zeta电位分析仪测定样品粒径及zeta电位。
1.3.10 氨基酸成分的测定
参照GB 5009.124—2016《食品安全国家标准 食品中氨基酸的测定》进行测定。
1.4 数据处理
所有试验进行3次平行测定,数据以“平均值±标准差”表示。用SPSS 26软件进行数据的显著性分析,Origin 2021软件进行图形的绘制,图或表中不同小写字母表示存在显著差异(P<0.05)。
2 结果与分析
2.1 加热时间对花生蛋白脱酰胺改性的影响
在脱酰胺反应过程中,随着加热时间的延长,花生蛋白的DD和DH持续增长,T呈现相反的趋势;当加热时间为120 min时,Y值最大为4.20,如电子版增强出版附图1所示(https://doi.org/10.13995/j.cnki.11-1802/ts.045128,下同)。加热时间的延长加剧了蛋白质分子的热运动,促使其空间结构展开,有利于内部酰胺基团的暴露与脱除[16],但同时也加剧了肽键的断裂,导致DH上升,并对T产生负面影响。基于Y值优化结果,选择加热时间90、120、150 min进行后续响应面试验。
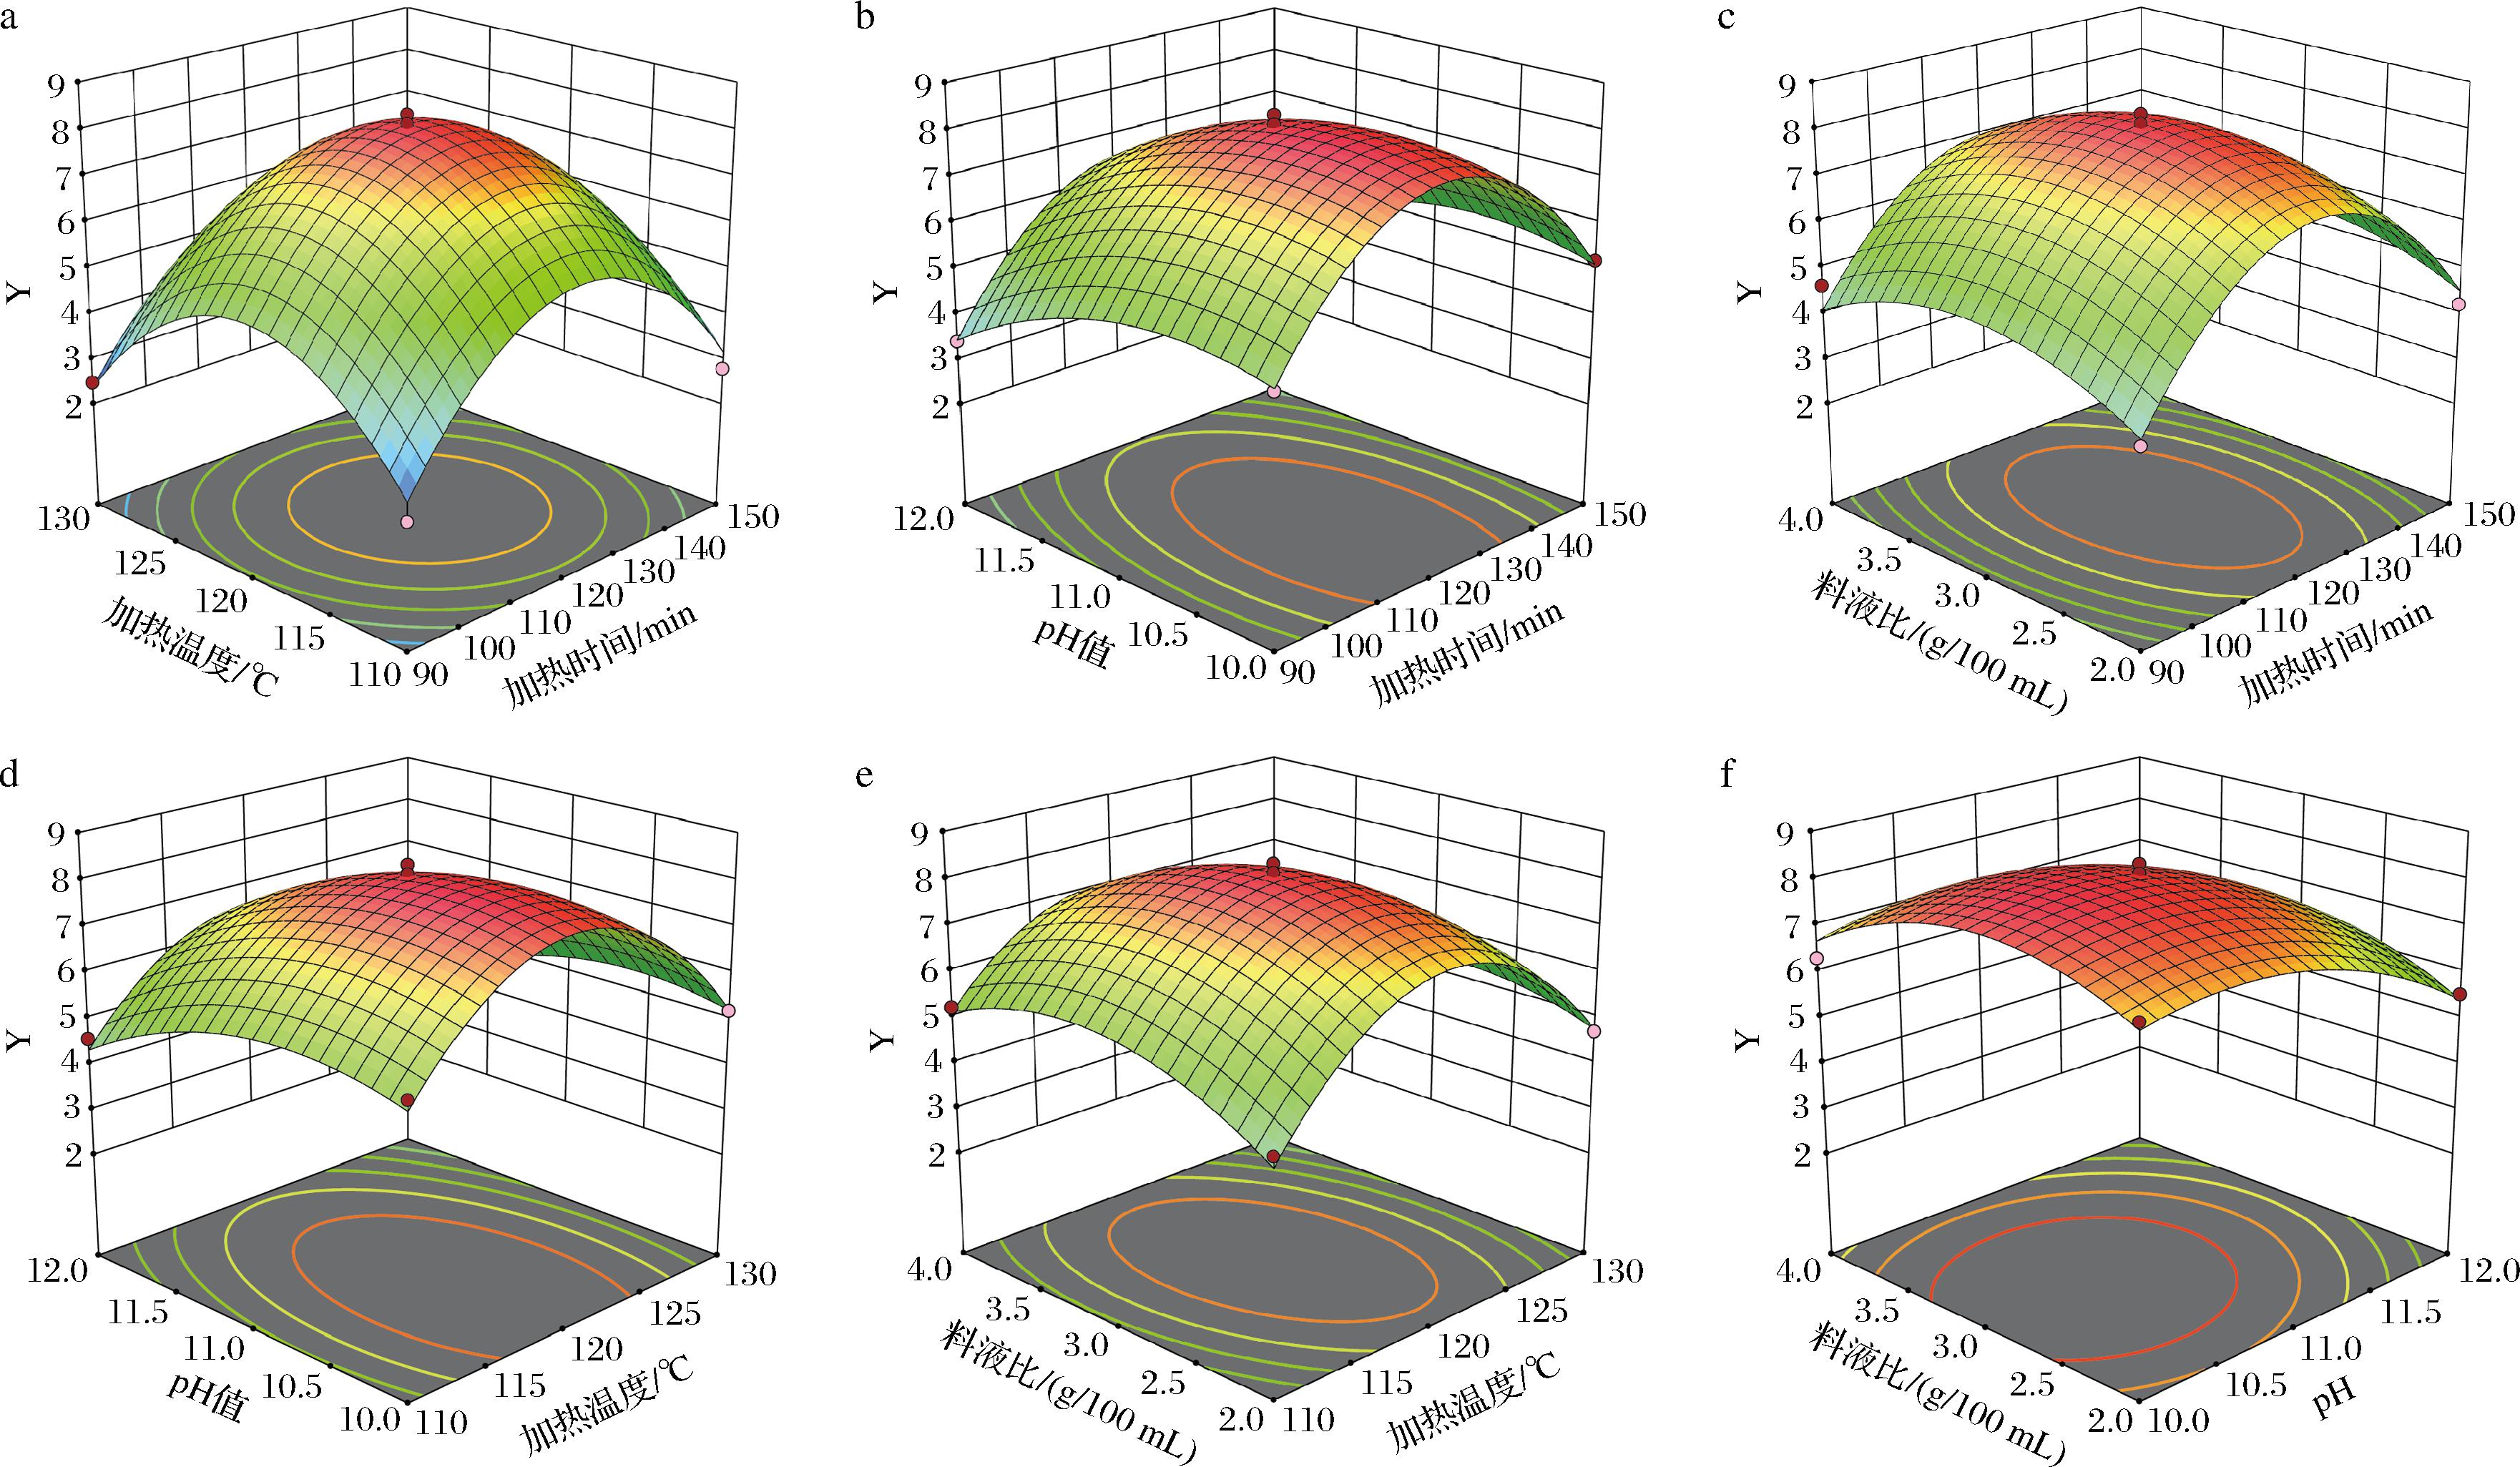
a-加热温度与加热时间;b-pH值与加热时间;c-料液比与加热时间;d-pH值与加热温度;e-料液比与加热温度;f-料液比与pH值
图1 因变量之间的交互作用对花生蛋白脱酰胺综合得分的影响
Fig.1 Effect of interaction between dependent variables on comprehensive score of deamidation of peanut protein
2.2 加热温度对花生蛋白脱酰胺改性的影响
随着温度的升高,花生蛋白的DD由9.48%上升至33.36%,DH由2.46%增加至5.23%;T则从77.66%下降至68.16%;Y在加热温度为120 ℃时达到最大值(附图2)。升温有助于酰胺基团暴露并促进其脱除,但温度过高会导致蛋白质结构过度伸展、肽链解离为小分子片段[17],同时由于小分子肽在酸沉阶段的溶解损失,降低了蛋白质的提取率。基于Y值优化结果,选择加热温度110、120、130 ℃进行响应面实验。
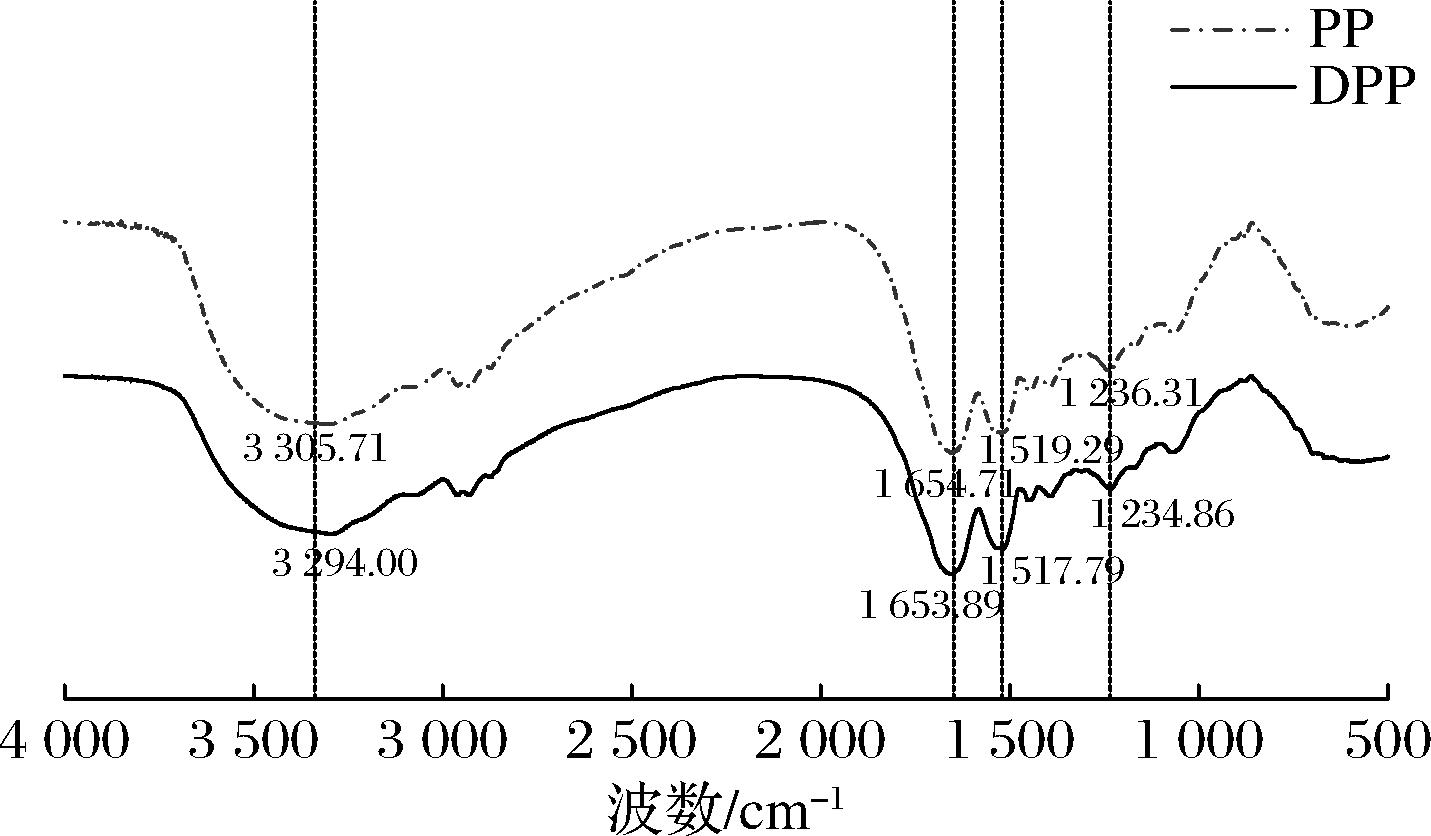
图2 PP和DPP的傅里叶红外光谱图
Fig.2 Fourier infrared spectra of PP and DPP
2.3 pH值对花生蛋白脱酰胺改性的影响
随着pH值增大,DD和DH呈现上升趋势,而T呈现先增大后减小的趋势;pH值为10时Y值达到峰值;在pH值为13的强碱条件下,DD与DH急剧上升,而T显著下降(附图3)。适度碱性环境可增强蛋白质分子表面电荷与静电排斥作用,有利于其溶解与脱酰胺反应[18],但过高的pH值会引起蛋白质不可逆变性与结构破坏,对改性效果与提取率产生不利影响。基于Y值的优化结果,最终选取pH 9、10、11进行响应面分析。
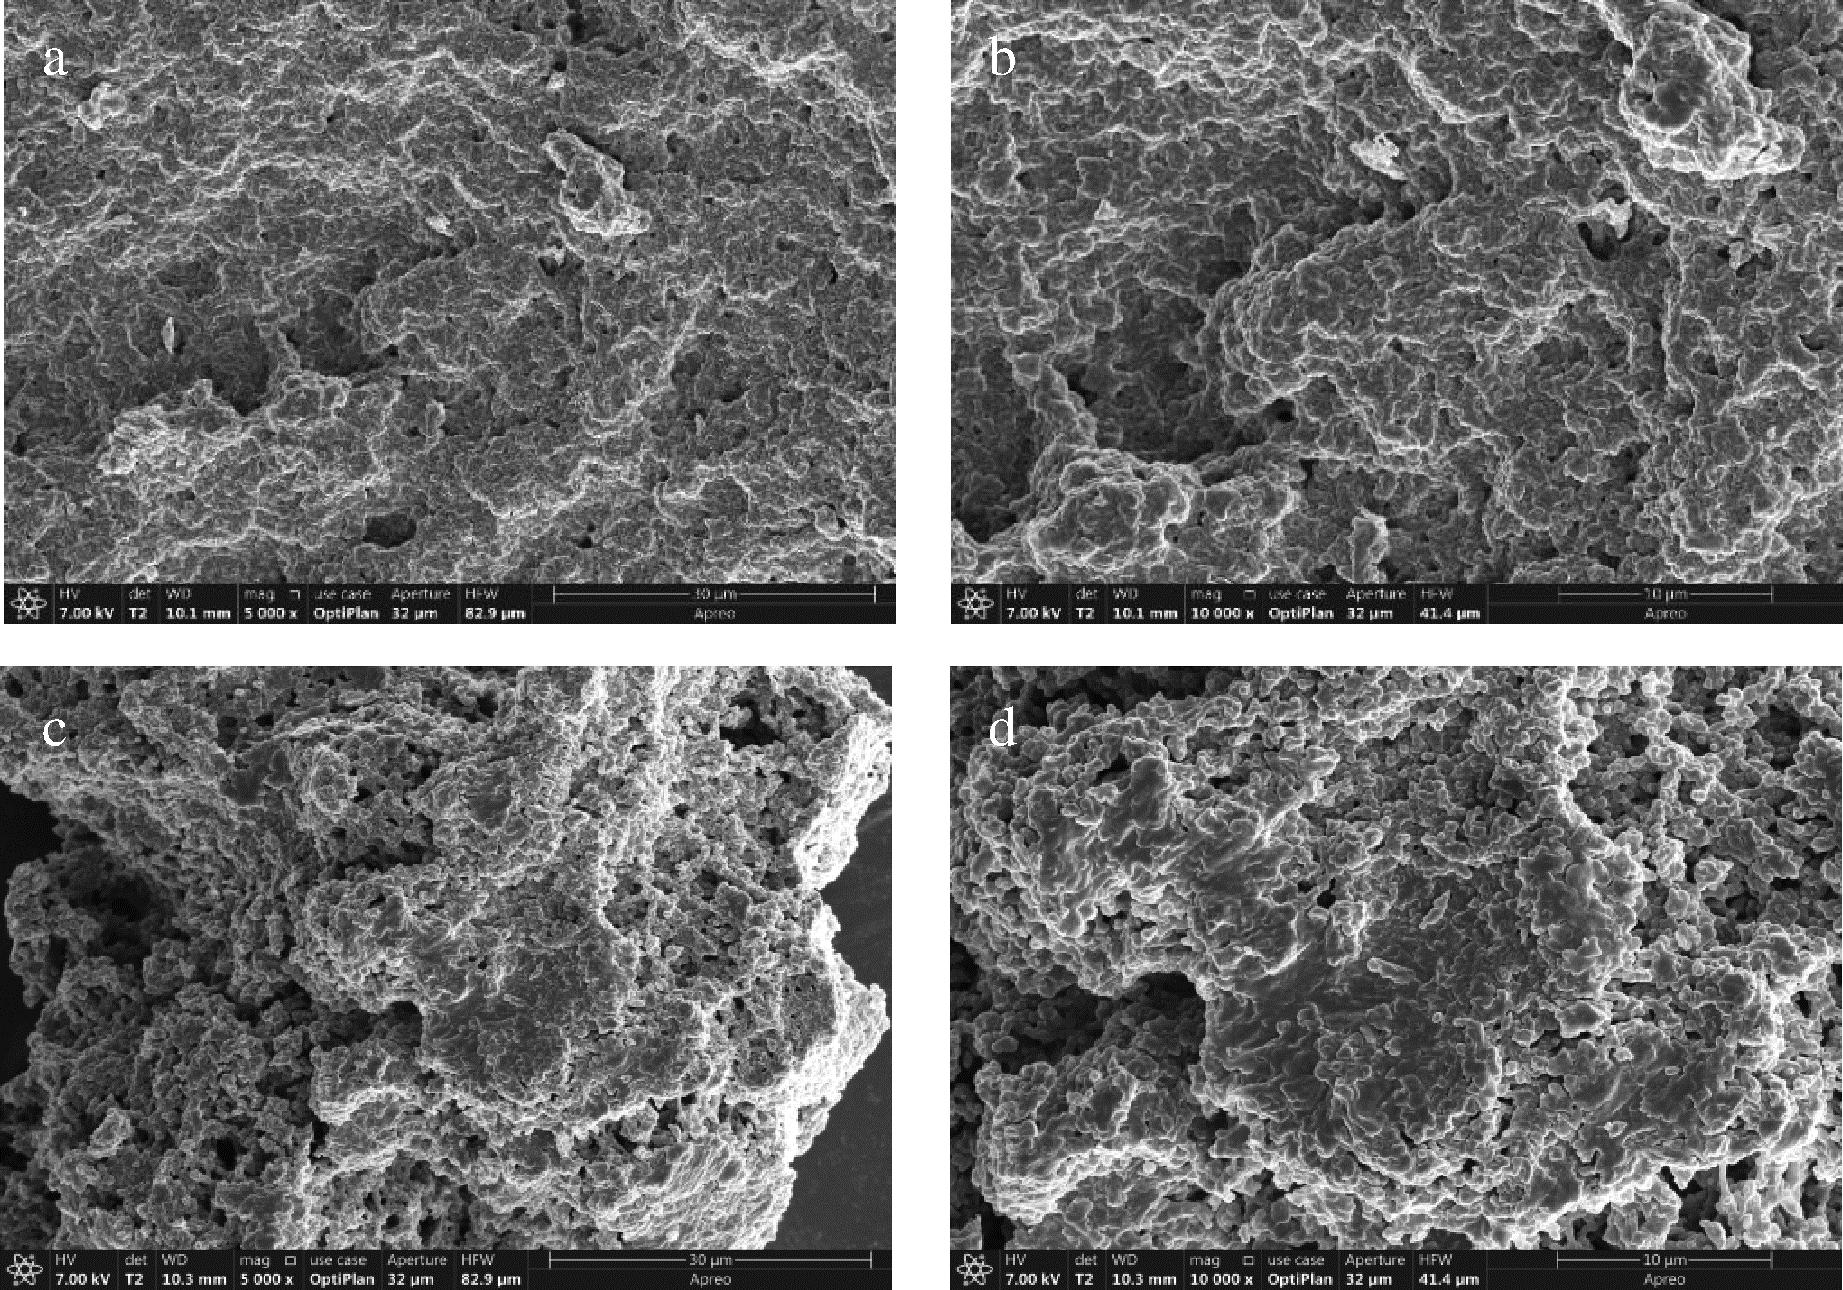
a-PP放大5 000倍;b-PP放大10 000倍;c-DPP放大5 000倍;d-DPP放大10 000倍
图3 PP和DPP的SEM图
Fig.3 SEM images of PP and DPP
2.4 料液比对花生蛋白脱酰胺改性的影响
随着料液比的升高,T逐渐降低;当料液比为2 g/100 mL时,DD和DH最低,分别为15.33%、1.82%,Y值在料液比为4 g/100 mL时达到最大值(7.14);继续提高料液比至4 g/100 mL以上,DD和DH变化趋于平缓(附图4)。较低的料液比有助于形成流动性良好的蛋白分散体系,促进蛋白溶解及脱酰胺反应。基于Y值的优化结果,选择2、3、4 g/100 mL进行响应面实验。
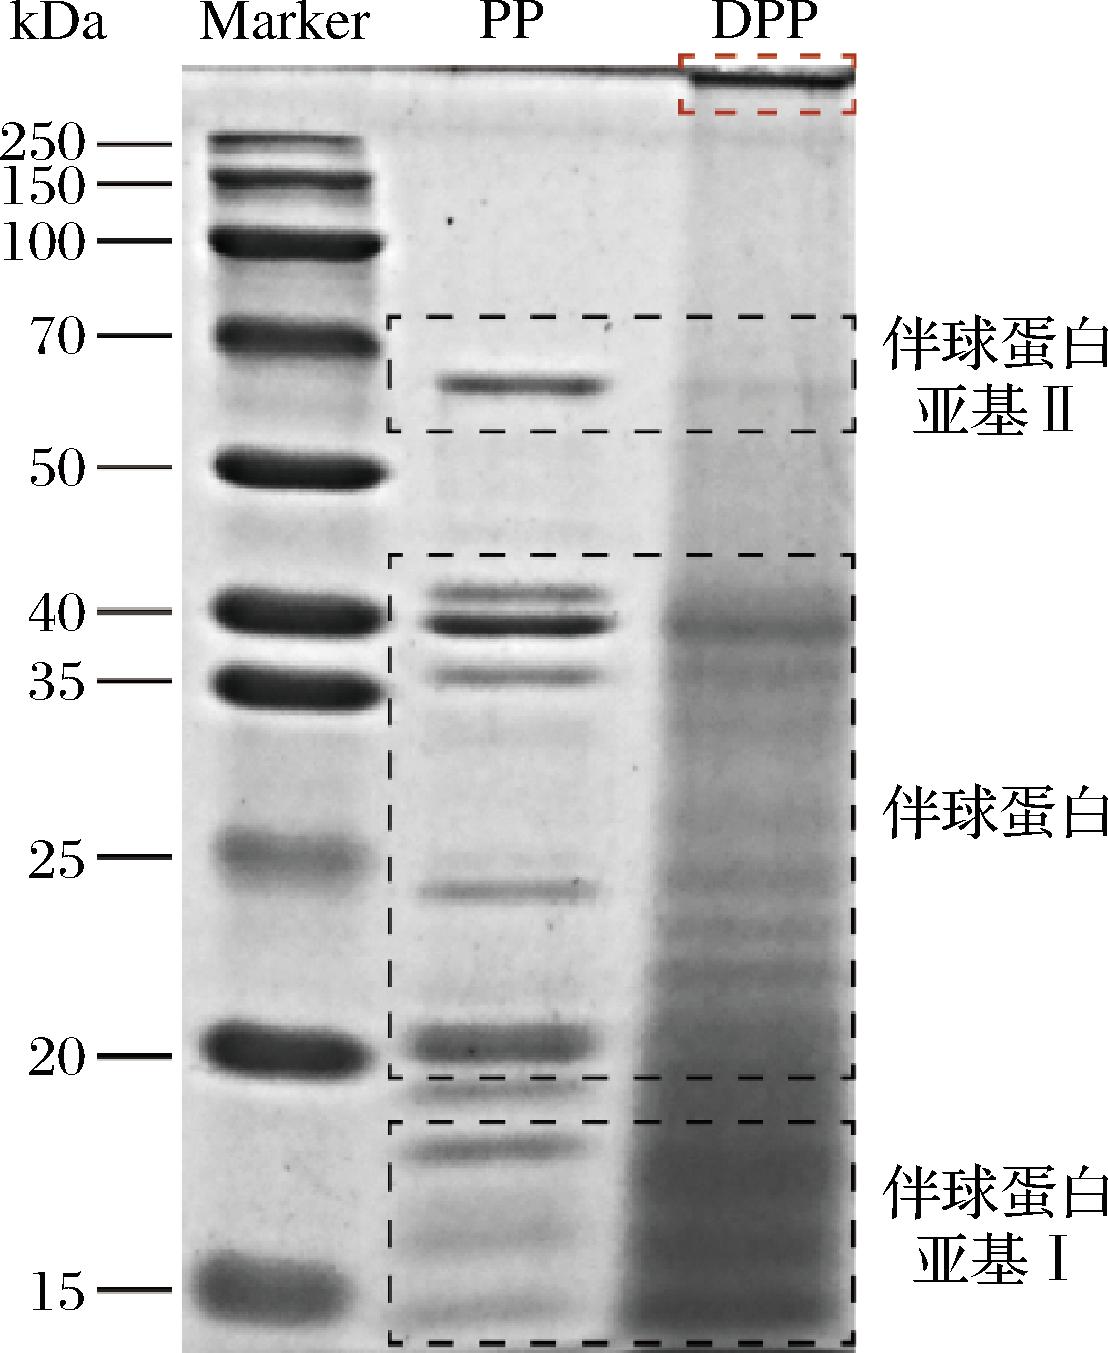
图4 PP和DPP的SDS-PAGE图
Fig.4 SDS-PAGE diagram of PP and DPP
2.5 响应面模型建立及结果分析
2.5.1 响应面试验结果
响应面的试验设计和结果如附表1所示,加热时间为120 min,加热温度为120 ℃,pH值为11,料液比为3 g/100 mL时,综合得分Y最高。
2.5.2 方差分析和回归分析结果
根据Box-Behnken Design模型,可得A(加热时间)、B(加热温度)、C(pH值)、D(料液比)与Y(综合评分)的二元多次回归拟合方程Y=8.12+0.15A-0.25B-0.69C-0.06D-0.05AB+0.10AC-0.11AD-0.08BC-0.42BD+0.14CD-2.86A2-2.54B2-0.87C2-1.05D2,回归模型极显著(P<0.01),失拟项不显著(P>0.05),决定系数R2为0.978 3,矫正决定系数Adjusted R2为0.953 1(附表2),表明回归方程拟合度好,试验结果可行度高。根据F值可以判断,各单因素对综合评分的影响大小为:C>B>A>D。
表2 PP和DPP的二级结构组成及相对含量 单位:%
Table 2 Secondary structure composition and relative content of PP and DPP
样品α-螺旋β-折叠β-转角无规则卷曲PP16.7641.5323.8717.54DPP16.2640.2026.6516.89
2.5.3 多因素交互作用分析
响应面随自变量变化的灵敏程度可由响应面曲线的斜率反映,斜率越大对响应值的影响越显著。由图1可知,pH值对花生蛋白脱酰胺的综合评分影响最显著,其次为加热温度、加热时间,料液比的斜率较缓,对综合评分的影响最小,这与附表2方差分析结果一致。
2.5.4 验证试验
根据回归模型进行计算,获得最佳脱酰胺工艺为加热时间120.6 min,加热温度119.6 ℃,pH 10.6,料液比2.9 g/100 mL,预测得分Y为8.262。根据实际可操作性修正为:加热时间120 min,加热温度120 ℃,pH值为10.6,料液比为3 g/100 mL,实际得分为8.218,与预测值接近,证实模型优化所得工艺参数准确可行。
2.6 脱酰胺改性对花生蛋白结构的影响
2.6.1 脱酰胺改性对花生蛋白二级结构的影响
图2为脱酰胺改性前后花生蛋白的傅里叶红外光谱图。PP和DPP在酰胺Ⅰ带(1 600~1 700 cm-1,C O伸缩振动和少量C—N伸缩振动引起),酰胺Ⅱ带(1 500~1 600 cm-1,N—H弯曲振动和C—N伸缩振动引起)、酰胺Ⅲ带(1 230~1 310 cm-1,多个振动模式叠加产生的复杂谱带)、3 300 cm-1附近均有特征吸收峰[19]。与PP相比,DPP在酰胺Ⅰ带的吸收峰从1 654.71 cm-1红移至1 653.89 cm-1,说明脱酰胺处理引起蛋白质氢键网络重组与二级结构转变,导致其构象发生改变。
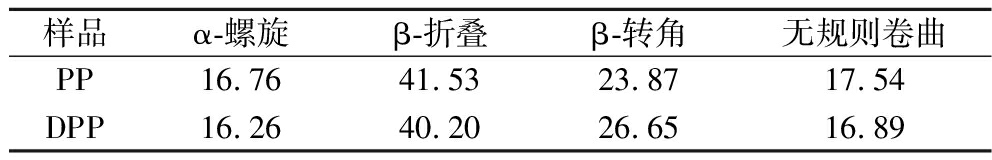
对酰胺I带(1 600~1 700 cm-1)进行分峰拟合,花生蛋白的二级结构的相对含量见表2。结果表明,相较于PP,DPP的α-螺旋、β-折叠的相对含量下降,而β-转角的比例上升。α-螺旋和β-折叠结构是高度有序且相对稳定的二级结构,其相对含量的下降可能是由于N—H和C—O链内稳定的氢键被破坏,促使内部疏水基团暴露[20]。β-转角是无序结构,其相对含量增加说明DPP肽链展开,分子柔性增强,增强了分子在界面的重排与铺展能力,有利于乳化性与起泡性的改善。这说明脱酰胺处理使PP由紧密有序的构象转变为无序疏松的构象[21]。
2.6.2 脱酰胺改性对花生蛋白微观结构的影响
通过SEM对脱酰胺前后花生蛋白的微观结构进行观察。如图3所示,PP结构相对完整,孔隙分布均匀,空间构象紧密有序;经脱酰胺处理后,DPP的微观形貌明显改变,表面粗糙多孔,呈现出团聚、堆叠的特征,多为颗粒团聚堆叠形成的疏松结构。脱酰胺处理后,DPP的酰胺基转变为带负电的羧基,蛋白质分子的净负电荷增加,分子内静电排斥力增加促使肽链伸展[22],造成蛋白质内部结构松散,与此同时,更多疏水基团与自由巯基的暴露,引发了疏水相互作用及二硫键交联,最终促使DPP聚集[23]。
2.6.3 脱酰胺改性对花生蛋白亚基的影响
通过SDS-PAGE对花生蛋白的亚基进行分析。如图4所示,PP和DPP的主要可见条带包括伴球蛋白亚基Ⅱ、伴球蛋白和伴球蛋白亚基Ⅰ。与PP相比,DPP在58~62 kDa附近的蛋白条带基本消失,在35~40 kDa附近的蛋白条带变浅且弥散,15~18 kDa附近的条带颜色加深,并在分离胶顶部出现高分子质量聚集条带。脱酰胺处理引起PP发生部分水解,使其由高分子质量亚基逐步降解为低分子质量多肽[24]。同时,在碱性热处理过程中,天然二硫键遭到破坏并重组为分子间二硫键,形成不溶性大分子聚集体,导致顶部聚集条带的出现,这与董月婕等[25]的研究结果一致。
2.6.4 脱酰胺改性对花生蛋白内源荧光光谱和表面疏水性的影响
由图5可看出,脱酰胺改性使花生蛋白的最大荧光发射波长从331.07 nm(PP)红移至349.07 nm(DPP)。蛋白质的内源荧光主要来源于其色氨酸(Trp)、酪氨酸(Tyr)和苯丙氨酸(Phe)残基,其最大发射波长与其所处微环境的极性密切相关[26]。脱酰胺过程将天冬酰胺和谷氨酰胺残基的侧链酰胺基转化为带负电荷的羧基基团,引入了大量的负电荷。这些新引入的电荷基团产生了强烈的分子内静电排斥力,破坏了维持蛋白质天然构象的相互作用力,DPP发生了解折叠,原本包埋于疏水内核的色氨酸残基暴露于亲水性环境[27],导致了荧光发射的红移。
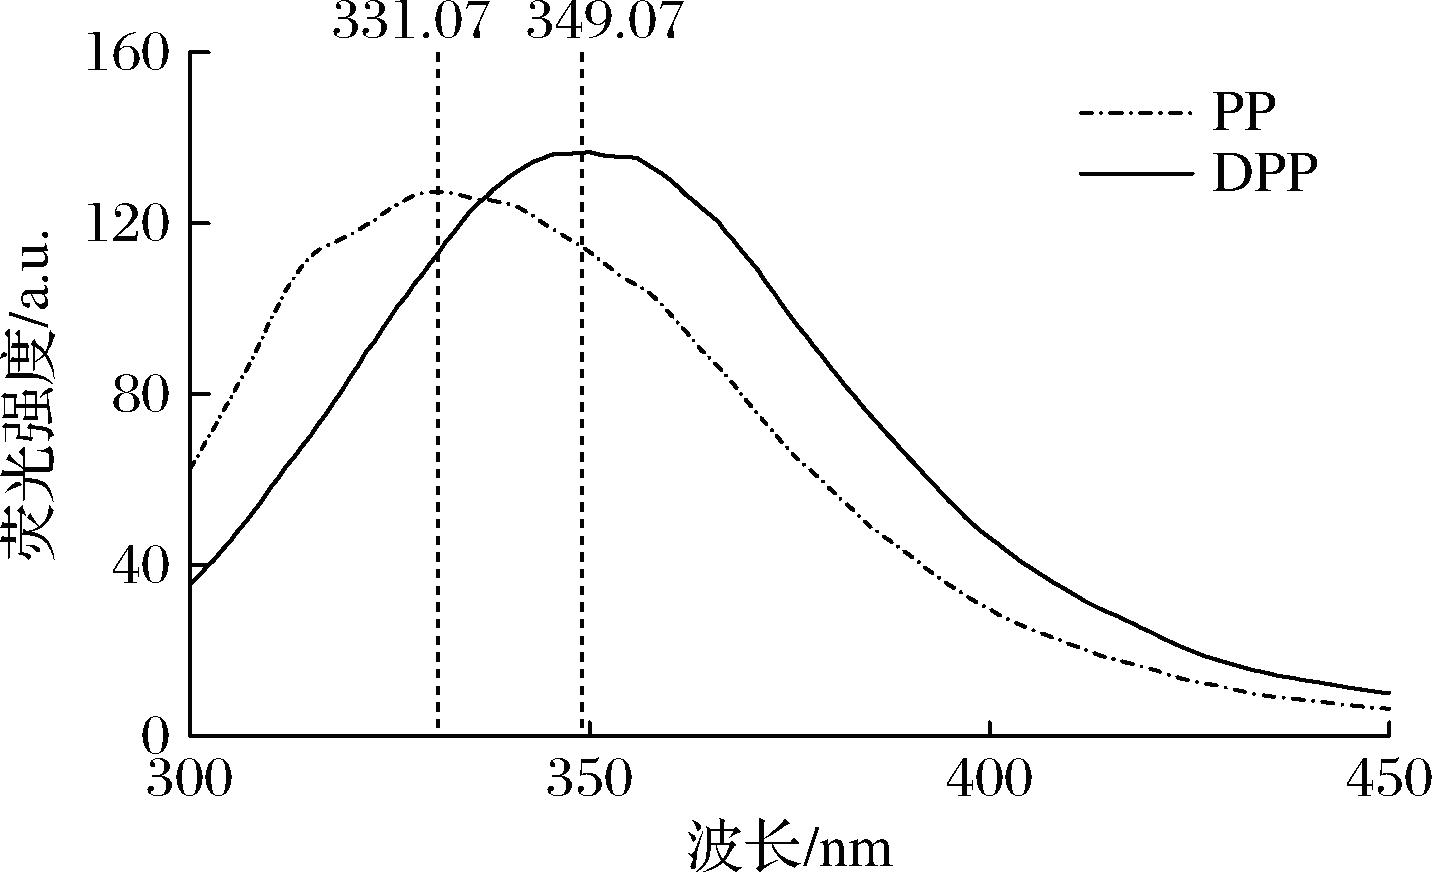
图5 PP和DPP的内源荧光光谱
Fig.5 Endogenous fluorescence spectra of PP and DPP
PP的表面疏水性为29.20±1.27,脱酰胺处理后,DPP的表面疏水性增加至200.83±16.06。天然PP将其疏水氨基酸侧链包埋在分子内部,因此表面疏水性较低,而脱酰胺处理引入的静电排斥力促使蛋白质空间结构展开,导致内部疏水基团暴露[28],表面疏水性增加。
2.7 脱酰胺改性对花生蛋白功能特性的影响
良好的溶解性是蛋白质进行加工和利用的前提,从图6可看出,在pH 2~10范围内,DPP的溶解度均高于PP;PP在pH 11时溶解度最大,而DPP的峰值则出现于pH 9。脱酰胺处理使DPP的中性酰胺基转变为带负电的羧基,极大地增加了蛋白质分子的净负电荷,增强了蛋白质分子之间以及蛋白质与水分子之间的静电排斥力[29],防止了蛋白质分子的聚集沉淀,从而提高了溶解度。
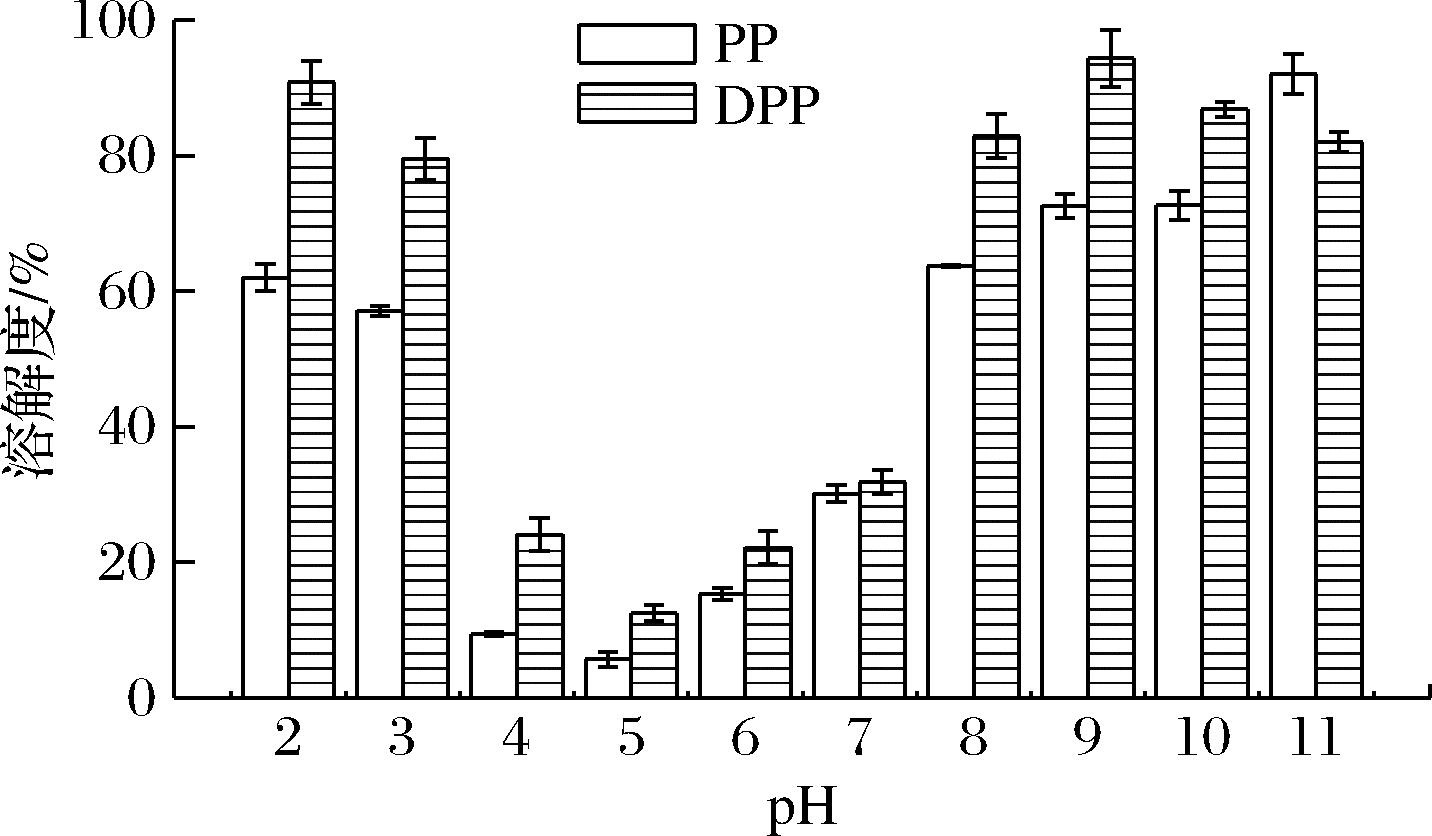
图6 PP和DPP的溶解度
Fig.6 Solubility of PP and DPP
由表3可知,与PP相比,DPP的FC提升至5.12倍,EAI、ESI、持水性、持油性均有提升,但FS有所下降。FC的增强主要是由于表面疏水性的大幅增强,促使DPP分子更快速吸附至气-液界面,且在形成的界面处,分子间的相互作用也更强[8]。然而,FS的降低反映出泡沫体系长期稳定性的减弱,这可能是由于分子表面净负电荷的急剧增加强化了吸附于界面上的蛋白质分子间的静电排斥作用,阻碍其在气-液界面上的相互作用,导致界面膜的强度和完整性不足,削弱了泡沫的稳定性[30]。此外,溶解度的提升与疏水基团的暴露增强了蛋白质的两亲性,既促进了其在油-水界面的吸附能力和稳定性[31],也改善了其持水性与持油性。结构展开后更多极性基团的暴露提升了水合能力,而表面疏水位点的增加则增强了与油脂的结合能力[32]。
表3 PP和DPP的功能特性
Table 3 Functional characteristics of PP and DPP

样品FC/%FS/%EAI/(m2/g)ESI/min持水性/%持油性/%PP13.92±1.4282.27±4.819.22±0.15104.76±10.091.88±0.041.97±0.01DPP71.33±2.3634.80±1.5710.51±0.71120.26±20.572.77±0.072.11±0.02
2.8 脱酰胺改性对花生蛋白粒径和zeta电位的影响
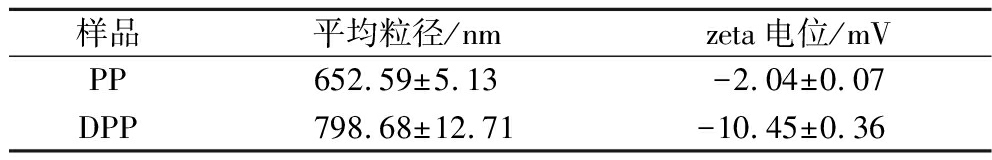
如图7和表4所示,与PP相比,DPP的平均粒径增加至798.68 nm,zeta电位绝对值增大。这表明DPP表面负电荷增多,其强烈的分子间静电排斥作用能有效阻止蛋白质颗粒相互靠近、聚集并最终沉淀[33]。然而DPP的平均粒径高于PP,这可能与脱酰胺引起的水解与结构重组有关,使得小分子肽通过疏水作用形成松散的聚集体[34]。而DPP表面负电荷的增强则提供了强大的静电排斥力使其稳定地分散在水中,而不是聚集并沉淀[35],因此DPP在水相中可形成稳定的胶体溶液。
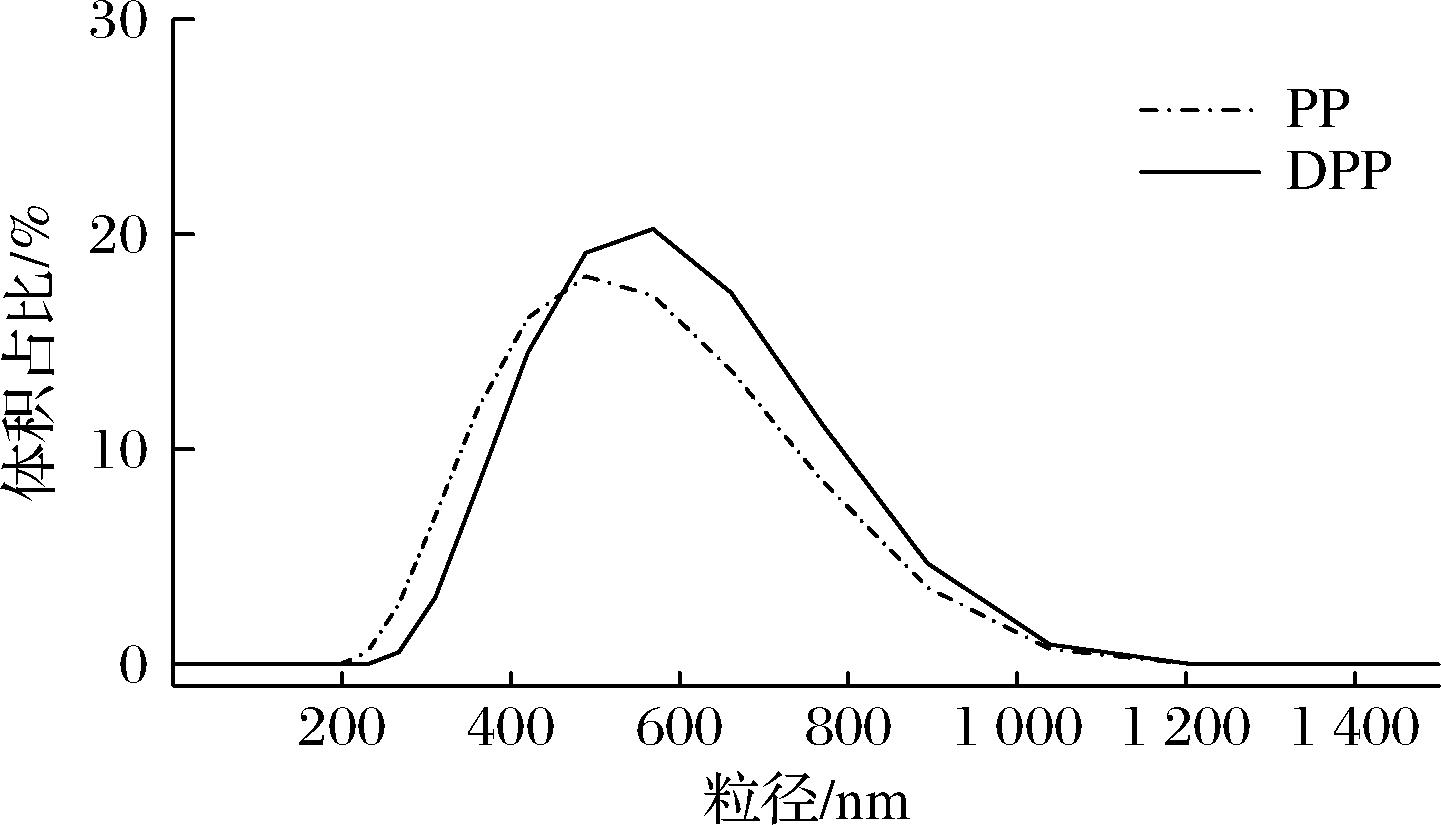
图7 PP和DPP的粒径分布
Fig.7 Particle size distribution of PP and DPP
表4 PP和DPP的平均粒径和zeta电位
Table 4 Average particle size and zeta potential of PP and DPP
样品平均粒径/nmzeta电位/mVPP652.59±5.13-2.04±0.07DPP798.68±12.71-10.45±0.36
2.9 脱酰胺改性对花生蛋白氨基酸组成的影响
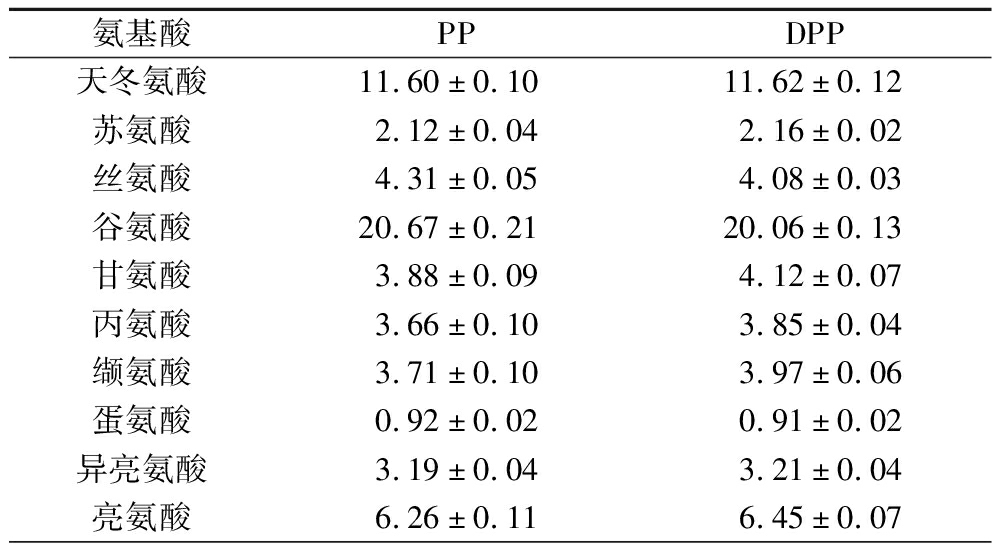
如表5所示,氨基酸含量最高的为谷氨酸,精氨酸次之,蛋氨酸为第一限制氨基酸,PP和DPP氨基酸的组成和含量差异不大,PP的氨基酸总量为91.74 g/100 g,疏水性氨基酸的含量为26.59 g/100 g;DPP的氨基酸总量为91.67 g/100 g,疏水性氨基酸含量为27.12 g/100 g。说明碱法脱酰胺工艺在改性的同时,基本保留了花生蛋白的营养价值。
表5 PP和DPP的氨基酸组成与含量 单位:g/100 g
Table 5 Amino acid composition and content of PP and DPP
氨基酸PPDPP天冬氨酸11.60±0.1011.62±0.12苏氨酸2.12±0.042.16±0.02丝氨酸4.31±0.054.08±0.03谷氨酸20.67±0.2120.06±0.13甘氨酸3.88±0.094.12±0.07丙氨酸3.66±0.103.85±0.04缬氨酸3.71±0.103.97±0.06蛋氨酸0.92±0.020.91±0.02异亮氨酸3.19±0.043.21±0.04亮氨酸6.26±0.116.45±0.07
续表5
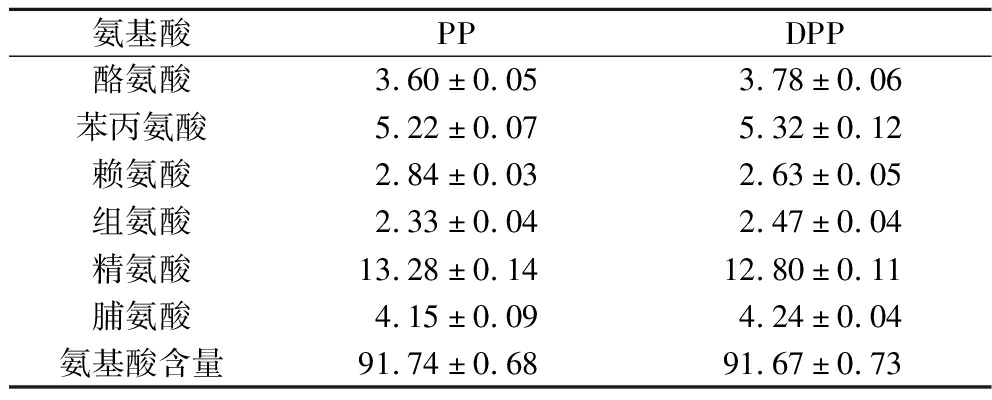
氨基酸PPDPP酪氨酸3.60±0.053.78±0.06苯丙氨酸5.22±0.075.32±0.12赖氨酸2.84±0.032.63±0.05组氨酸2.33±0.042.47±0.04精氨酸13.28±0.1412.80±0.11脯氨酸4.15±0.094.24±0.04氨基酸含量91.74±0.6891.67±0.73
3 结论
本研究采用碱法脱酰胺改性花生蛋白,系统分析了其结构与功能特性的变化规律。结果表明,最优脱酰胺工艺条件为:加热时间120 min,加热温度120 ℃,pH 10.6,料液比3 g/100 mL。在该条件下,脱酰胺反应将酰胺基转化为羧基,在保持PP氨基酸组成的基础上,通过诱导结构变化,有效提升其功能特性。结构分析表明,DPP的α-螺旋、β-折叠结构有序结构减少,β-转角比例增加,原本包埋于分子内部的疏水基团暴露,表面疏水性升高;SDS-PAGE结果进一步证实脱酰胺处理引起部分蛋白水解与分子间交联;SEM观察到DPP形成粗糙多孔、结构疏松的聚集体。功能特性分析表明,在pH 2~10范围内DPP的溶解度提升,起泡性、乳化性、乳化稳定性、持水性和持油性等均有改善,且能在水相中形成稳定的胶体分散体系。然而,本研究尚未在真实食品体系中验证其应用效果,也未系统评估其长期贮藏稳定性,这些可作为后续研究的重点方向。综上所述,碱法脱酰胺是一种能有效改善花生蛋白功能特性的改性方法,本研究为花生蛋白的进一步的研究和应用提供了基础理论参考。
[1] Boukid F. Peanut protein—an underutilised by-product with great potential: A review[J]. International Journal of Food Science &Technology, 2022, 57(9):5585-5591.
[2] Zhang X, Yan D M, Qiu W J, et al. Effects of ultrasound combined with pH shift modification on functional and structural properties of peanut proteins[J]. International Journal of Biological Macromolecules, 2024, 283:137874.
[3] Zhao T, Ying P F, Zhang Y H, et al. Research advances in the high-value utilization of peanut meal resources and its hydrolysates: A review[J]. Molecules, 2023, 28(19):6862.
[4] Wang M Y, Bu G H, Zhu T W, et al. Effects of enzymatic hydrolysis combined with glycation on the emulsification characteristics and emulsion stability of peanut protein isolate[J]. Food Research International, 2024, 192:114722.
[5] 唐小倩, 邓乾春, 张修华, 等. 脱酰胺修饰对植物蛋白功能特性影响研究进展[J]. 现代食品科技, 2025, 41(4):82-96.Tang X Q, Deng Q C, Zhang X H, et al. Research progress on the effect of deamidation modification on the functional properties of plant proteins[J]. Modern Food Science &Technology, 2025, 41(4):82-96.
[6] 芦鑫, 孟雅昆, 张丽霞, 等. 花生蛋白酸法去酰胺条件的优化及其性质表征[J]. 食品工业科技, 2018, 39(11):183-189.Lu X, Meng Y K, Zhang L X, et al. Condition optimization and properties characterization of peanut protein modified by acidic deamination[J]. Science and Technology of Food Industry, 2018, 39(11):183-189.
[7] Meenmanee S, Rattananukrom A, Thaiphanit S, et al. Improvement of solubility, foaming, and emulsification properties of coconut (Cocos nucifera L.) protein by non-enzymatic deamidation[J]. LWT, 2022, 153:112493.
[8] Frempong K E B, He G Q, Kuang M, et al. Improvement of amphipathic properties with molecular structure unfolding and activation of cottonseed protein as ultra stable and safe emulsifier by deamidation[J]. International Journal of Biological Macromolecules, 2023, 247:125802.
[9] Shahid A, Haq M A, Hussain N, et al. Impact of deep eutectic solvent deamidation on the solubility and conformation of rice dreg protein isolate[J]. Cereal Chemistry, 2025, 102(1):80-88.
[10] 高思聪, 黄文选, 黄志超, 等. 食叶草蛋白的提取工艺及其性质研究[J]. 食品与发酵工业, 2025(1):189-198.Gao S C, Huang W X, Huang Z C, et al. Study on the extraction process and properties of protein from edible dock[J]. Food and Fermentation Industries, 2025(1):189-198.
[11] Chen H H, Xu B, Wang Y, et al. Emerging natural hemp seed proteins and their functions for nutraceutical applications[J]. Food Science and Human Wellness, 2023, 12(4):929-941.
[12] Zhang Q, Ouyang K F, Huang F, et al. Evaluating the effects of protein-glutaminase treatment on the structural and functional properties of pumpkin (Cucurbita moschata) seed protein[J]. International Journal of Biological Macromolecules, 2025, 309:142989.
[13] 刘立鹏, 方晓敏, 姜鑫, 等. 发芽处理对玉米醇溶蛋白结构、热特性及乳化特性的影响[J]. 中国食品学报, 2024, 24(7):252-260.Liu L P, Fang X M, Jiang X, et al. Effect of germinating treatment on structure, thermal and emulsifying properties of zein[J]. Journal of Chinese Institute of Food Science and Technology, 2024, 24(7):252-260.
[14] 李春强, 刘俊, 赵虹霏, 等. 加热-超声-pH偏移联合改性大豆球蛋白纳米颗粒的制备及稳定性研究[J]. 中国食品学报, 2023, 23(10):178-194.Li C Q, Liu J, Zhao H F, et al. Studies on preparation and stability of SG nanoparticles modified by heating-ultrasound-pH shifting[J]. Journal of Chinese Institute of Food Science and Technology, 2023, 23(10):178-194.
[15] 崔晨露, 赵勇, 徐静雯. 脱酰胺和磷酸化改性双孢菇蛋白质及其性质研究[J]. 食品与发酵工业, 2025, 51(17):265-270.Cui C L, Zhao Y, Xu J W. Deamidation and phosphorylation modified proteins from Agaricus bisporus and study on its properties[J]. Food and Fermentation Industries, 2025, 51(17):265-270.
[16] 高琦, 许燕玲, 赵梦鸽, 等. 盐酸法脱酰胺结合酶解制备高携钙能力鸭蛋蛋清肽[J]. 食品与发酵工业, 2019, 45(3):131-137.Gao Q, Xu Y L, Zhao M G, et al. Preparation of high calcium-binding duck egg white peptides using hydrochloric acid deamidization combined with enzymolysis[J]. Food and Fermentation Industries, 2019, 45(3):131-137.
[17] 冷雪冬, 孙华军, 陈明明, 等. 壳聚糖改性米糠蛋白反应条件优化及性质研究[J]. 黑龙江八一农垦大学学报, 2024, 36(2):69-76; 83.Leng X D, Sun H J, Chen M M, et al. Optimization of the reaction conditions and properties of rice bran protein complex pentoglycation[J]. Journal of Heilongjiang August First Land Reclamation University, 2024, 36(2):69-76; 83.
[18] 姚璇, 吕晓慧, 金永国, 等. 动、植物蛋白的酰化改性及其应用研究进展[J]. 食品科学, 2024, 45(16):337-346.Yao X, Lyu X H, Jin Y G, et al. Research progress on acylation modification and application of animal and vegetable proteins[J]. Food Science, 2024, 45(16):337-346.
[19] Zheng L, Zhao Y J, Xiao C Q, et al. Mechanism of the discrepancy in the enzymatic hydrolysis efficiency between defatted peanut flour and peanut protein isolate by Flavorzyme[J]. Food Chemistry, 2015, 168:100-106.
[20] Montellano Duran N, Galante M, Spelzini D, et al. The effect of carrageenan on the acid-induced aggregation and gelation conditions of quinoa proteins[J]. Food Research International, 2018, 107:683-690.
[21] 高凤. 水酶法提取花生蛋白及蛋白饮料稳定性研究[D]. 天津: 天津科技大学, 2023.Gao F. Study on the stability of peanut protein extracted by hydroenzymatic method and protein beverage[D], Tianjin: Tianjin University of Science and Technology, 2023.
[22] Shen Q, Dai H M, Wen L M, et al. Effects of pH-shifting treatments on the emulsifying properties of rice protein isolates: Quantitative analysis of interfacial protein layer[J]. Food Research International, 2023, 164:112306.
[23] Liu H, Liang Y, Zhang S Y, et al. Cooking mediated wheat gluten aggregation behavior: Physicochemical properties and component changes[J]. Food Hydrocolloids, 2023, 144:108957.
[24] Zhang L, Zhang J, Zhang K, et al. Effects of protein-glutaminase on the properties of glutinous rice flour, paste, and gel food: Based on the interactions between the deamidated protein and starch[J]. Food Chemistry, 2024, 459:140387.
[25] 董月婕, 章绍兵, 杨雨轩. 碱性pH偏移结合超声处理对花生蛋白结构与功能性质的影响[J]. 河南工业大学学报(自然科学版), 2025, 46(4):19-27.Dong Y J, Zhang S B, Yang Y X. Effect of alkaline pH shifting combined with ultrasound on the structural and functional properties of peanut protein[J]. Journal of Henan University of Technology (Natural Science Edition), 2025, 46(4):19-27.
[26] Chen W J, Wang W J, Ma X B, et al. Effect of pH-shifting treatment on structural and functional properties of whey protein isolate and its interaction with (-)-epigallocatechin-3-gallate[J]. Food Chemistry, 2019, 274:234-241.
[27] Ren L Y, Liu J Y, Zhang X Q, et al. Emulsion, gelation, physicochemical properties and microstructure of phosphorylated and succinylated egg yolk[J]. LWT, 2020, 131:109675.
[28] 彭嘉淇, 陈林, 姬文晋, 等. 柠檬酸脱酰胺改善小麦面筋蛋白乳化特性的作用机理研究[J]. 食品与发酵工业, 2025, 51(24):163-171; 186.Peng J Q, Chen L, Ji W J, et al. Study on mechanism of citric acid-induced deamidation improving emulsifying properties of wheat gluten[J]. Food and Fermentation Industries, 2025, 51(24):163-171; 186.
[29] Guan J T, Takai R, Toraya K, et al. Effects of alkaline deamidation on the chemical properties of rice bran protein[J]. Food Science and Technology Research, 2017, 23(5):697-704.
[30] Mohanty U, Majumdar R K, Mohanty B, et al. Influence of the extent of enzymatic hydrolysis on the functional properties of protein hydrolysates from visceral waste of Labeo rohita[J]. Journal of Food Science and Technology, 2021, 58(11):4349-4358.
[31] Hu J R, Liu Y P, Guo Y N, et al. High internal phase Pickering emulsions for 3D printing constructed from enzyme deamidated peanut protein microgel particles[J]. Food Hydrocolloids, 2026, 173:112207.
[32] Deng Y M, Lu Y L, Jiang Y X, et al. Effect of cold plasma treatment time on walnut protein isolate: Revealing structural changes and improving functional properties[J]. International Journal of Biological Macromolecules, 2025, 311:143693.
[33] 孟瑞龙. 花生品种及酸处理对蛋白结构与功能性质的影响[D]. 郑州: 河南工业大学, 2024.Meng R L. Effects of peanut varieties and acid treatment on protein structure and functional properties[D], Zhengzhou: Henan University of Technology, 2024.
[34] 平静, 章绍兵, 王文娟. 热处理对花生蛋白结构与乳化性质的影响[J]. 河南工业大学学报(自然科学版), 2025, 46(2):62-70.Ping J, Zhang S B, Wang W J. Effect of heat treatment on the structure and emulsifying properties of peanut protein[J]. Journal of Henan University of Technology (Natural Science Edition), 2025, 46(2):62-70.
[35] Jiang L Z, Wang J, Li Y, et al. Effects of ultrasound on the structure and physical properties of black bean protein isolates[J]. Food Research International, 2014, 62:595-601.