牡蛎是全球重要的高经济价值养殖贝类。其中华南地区的香港牡蛎(Crassostrea hongkongensis)作为主要养殖品种之一,是区域海洋渔业的核心经济品种之一。由于牡蛎鲜品运输周期长、保鲜成本高,限制其在内陆市场的拓展与资源利用率的提升,冷冻保鲜技术成为其长期保存与远距离流通的关键手段。冷冻处理可通过减缓生化反应、抑制酶活性及微生物生长,维持水产品新鲜度与食用品质[1]。但在冻藏与解冻过程中,冰晶形成、蛋白质变性及脂质氧化会导致牡蛎出现色泽劣变、质地松散与持水力下降等品质问题,严重降低商品价值[2-3]。添加抗冻剂是缓解冷冻劣变的常用手段。焦磷酸钠、海藻糖、脯氨酸、大豆分离蛋白、茶多酚及山梨糖醇等抗冻剂可通过调节理化环境、稳定生物大分子结构或抑制氧化反应等机制,不同程度延缓蛋白质变性与脂质氧化[4-7]。但各类抗冻剂应用均存在一定局限:焦磷酸钠等磷酸盐受法规限量约束,山梨糖醇的高甜度可能限制其在追求原味产品中的应用,而茶多酚、大豆分离蛋白、脯氨酸及海藻糖等潜力物质对冻融牡蛎综合品质的维持效果,尚未在统一实验体系下得到充分验证与比较。此外,尽管多糖、抗冻蛋白等新型抗冻剂研究取得一定进展[8-9],但存在工业应用成本高、效果稳定性不足等局限,短期内难以替代传统抗冻剂。总体而言,现有研究多集中于单一或复配效果验证,尚缺乏在统一框架下对不同类型抗冻剂进行多维度比较的系统研究,这导致在实际生产中难以精准筛选高效、安全的抗冻剂。
因此,本研究选取焦磷酸钠、海藻糖、脯氨酸、大豆分离蛋白、茶多酚及山梨糖醇6种抗冻剂,系统比较其对冻融牡蛎肉品质劣变的抑制效果,评估各类抗冻剂对维持冻融牡蛎肉品质的潜力,以期为冷冻牡蛎产业选用抗冻剂提供直接的理论依据,并推动牡蛎冷冻保鲜技术的升级。
1 材料与方法
1.1 材料与试剂
香港牡蛎,湛江市霞山水产市场;焦磷酸钠(食品级),湖北兴发化工集团股份有限公司;海藻糖(食品级,纯度98%),通辽梅花生物科技有限公司;茶多酚(食品级),郑州蔚辰生物科技有限公司;大豆分离蛋白(食品级),临沂山松生物制品有限公司;脯氨酸(食品级),郑州蔚辰生物科技有限公司;山梨糖醇(食品级),河南万邦化工科技有限公司;三羟甲基氨基甲烷,北京酷来搏科技有限公司;NaCl,上海麦克林生化科技股份有限公司;PBS、2.5%戊二醛,上海源叶生物科技有限公司;无水乙醇,天津市汇航化工;盐酸,广州化学试剂厂;冰乙酸,国药集团化学试剂有限公司。
1.2 主要仪器设备
TA.XTplus质构仪,英国Stable Micro Systems公司;NR60CP色差仪,深圳三恩时科技有限公司;5810R冷冻离心机,德国Eppendorf公司;NMI20-060H-I低场核磁共振仪,上海纽迈电子科技有限公司;JSM-7610F扫描电子显微镜,日本电子株式会社;PHS-3C型pH计,上海仪电科学仪器股份有限公司;Varioskan全自动酶标仪,赛默飞世尔科技有限公司。
1.3 实验方法
1.3.1 样品处理
将新鲜牡蛎洗净,去除表面碎肉与碎壳后,以牡蛎肉与溶液质量比为1∶2分别浸泡于不同溶液中。实验设7个组别,包括空白对照(negative control, NC,蒸馏水),6个处理组:3%焦磷酸钠(pyrophosphate compound, PC)、3%海藻糖(trehalose, TRE)、0.8%茶多酚(tea polyphenols, TP)、6%大豆分离蛋白(soy protein isolate, SPI)、3%脯氨酸(proline, PRO)与4%山梨糖醇(sorbitol, SOR)(所述浓度均为质量分数)。各抗冻剂浓度参考冷冻水产品抗冻保鲜领域相关文献[10-13]确定,确保所选浓度处于有效且常用范围内,兼顾抗冻效果与实际应用可行性。所有处理均在4 ℃浸泡1 h。浸泡完成后,取出牡蛎样品,擦干表面水分,装入自封袋中,置于-18 ℃冰箱内冷冻贮藏24 h,随后转移至4 ℃冰箱解冻12 h,此过程记为1次冻融循环。本实验共计进行3次循环。最终循环结束后,将样品于4 ℃下完全解冻,以备后续指标分析。
1.3.2 pH测定
测定参照 GB 5009.237—2016《食品安全国家标准 食品pH值的测定》进行。确称取绞碎后的牡蛎肉样品 10.00 g,加入 90 mL 蒸馏水,匀浆处理后,于 4 ℃、2 500 r/min离心10 min。吸取20 mL 上清液置于50 mL烧杯中,使用pH计进行测定。
1.3.3 解冻损失率的测定
从-18 ℃冰箱取出并称取样品记录质量(m1)。随后,将解冻的牡蛎肉擦干表面水分,记录质量(m2)。解冻损失率计算如公式(1)所示:
解冻损失率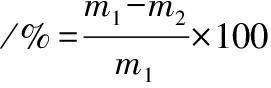
(1)
1.3.4 蒸煮损失率的测定
去除解冻样品的表面水,并称取记录样品质量(m3)。随后,将解冻的牡蛎肉蒸煮5 min,记录质量(m4)。蒸煮损失率计算如公式(2)所示:
蒸煮损失率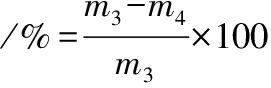
(2)
1.3.5 离心持水力的测定
去除解冻样品的表面水,并称取记录样品质量(m5)。将解冻的牡蛎肉包裹在滤纸中,置于底部有棉花的离心管中,以3 000×g离心10 min。离心后,取出滤纸,称取样品(m6)。离心损失率计算如公式(3)所示:
离心损失率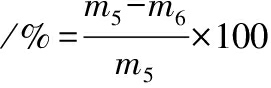
(3)
1.3.6 水分分布的测定
参照潘扬等[14]的方法并稍加修改。使用CPMG序列,各参数设定如下:90°脉冲时间(P1)=7.52 μS,180°脉冲时间(P2)=15.04 μS, 采样点数(TD)=240 026,脉冲重复增益(PRG)=3,射频延迟时间(RFD)=0.080 ms,回波时间(TE)=0.200 ms,等待时间(TW)=2 500 ms,回波个数(NECH)=6 000,累加采样次数(NS)=4。
1.3.7 质构测定
参照Li等[15]的方法并稍加修改。去除解冻样品的表面水,测定部位为牡蛎的闭壳肌和腹部组织。质构仪测定参数:采用P50探头,测前速度2 mm/s,测中速度1 mm/s,测后速度2 mm/s,形变程度40%,压缩次数2次。
1.3.8 微观结构测定
根据Wang等[16]的方法并稍加修改。将牡蛎闭壳肌切成薄片用25 g/L的戊二醛固定液在4 ℃下固定24 h,用PBS(pH 7.2)洗涤3次,用梯度(体积分数为30%、50%、70%、90%、100%)系列乙醇溶液脱水后,在冷冻干燥机中干燥。将样品粘在样品架上并进行溅射涂层,然后转移到扫描电子显微镜进行成像。
1.3.9 色差测定
参照Liang等[17]的方法并稍作改动,每组取3个样品,采用色差仪测定牡蛎腹部亮度值(L*)、红绿值(a*)、黄蓝值(b*)。白度值计算如公式(4)所示:
白度值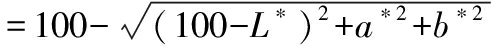
(4)
1.3.10 肌原纤维蛋白的提取
参照史羽瑶[18]的方法并稍加修改。取4 g牡蛎闭壳肌样品,加入 30 mL 预冷的 0.1 mol/L NaCl-20 mmol/L Tris-HCl 缓冲液(pH 7.5)。冰浴条件下匀浆1 min后,9 000 r/min 离心10 min,弃上清液后,将沉淀再加入20 mL 预冷的 0.6 mol/L NaCl-20 mmol/L Tris-HCl缓冲液(pH 7.5)中复溶,再离心。重复此步骤2次,将复溶的肌原纤维蛋白溶液于4 ℃提取1 h后,再5 000 r/min 离心10 min,得肌原纤维蛋白溶液。将得到的肌原纤维蛋白溶液保存在4 ℃冰箱,24 h内测定总巯基含量和Ca2+-ATP酶活性。
1.3.11 总巯基含量测定
使用南京建成生物工程研究所的总巯基测定试剂盒(货号:A063-1-1)进行测定,具体操作步骤遵循试剂盒说明书。
1.3.12 Ca2+-ATP酶活性测定
采用南京建成生物工程研究所的Ca2+-ATP酶测定试剂盒(货号:A070-2-1)进行测定,具体操作步骤严格遵循试剂盒说明书。酶活性以U/mg prot表示。
1.3.13 丙二醛(malondialdehyde,MDA)含量测定
使用南京建成生物工程研究所的MDA测定试剂盒(货号:A003-1-1),采用硫代巴比妥酸法进行测定,操作按说明书进行。含量以nmol/g表示。
1.4 数据处理与分析
实验数据结果取3次平行实验的平均值,结果以“平均值±标准差”表示。采用SPSS 27 和Excel 2021软件处理与分析数据,使用Origin 2021软件进行图形绘制。
2 结果与分析
2.1 不同抗冻剂对牡蛎肉pH的影响
pH值是反映水产品品质变化的关键指标之一,当pH值降至5以下,牡蛎就被认为变质。由图1可知,PC组的pH值最高,且与其他所有组存在显著差异;其他抗冻剂处理组的pH值较为接近,均处在 6.35~6.50。这可能与抗冻剂的理化性质有关,焦磷酸钠作为一种磷酸盐,其水溶液可调节和缓冲肌肉的pH值,使蛋白质等电点偏离环境pH,从而增强蛋白质分子间的静电斥力,这有助于提升其持水能力[19]。NC组作为空白对照,反映了牡蛎在反复冻融过程中的自然酸化,可能与在反复冻融循环中,ATP降解等生化反应导致H+增加有关[20]。其他抗冻剂处理组pH值显著低于NC组,虽海藻糖、山梨糖醇等本身接近中性,不具备显著的缓冲或碱化能力,但抗冻剂的引入可能改变了肌肉体系的离子强度,从而导致其处理组pH值的降低。
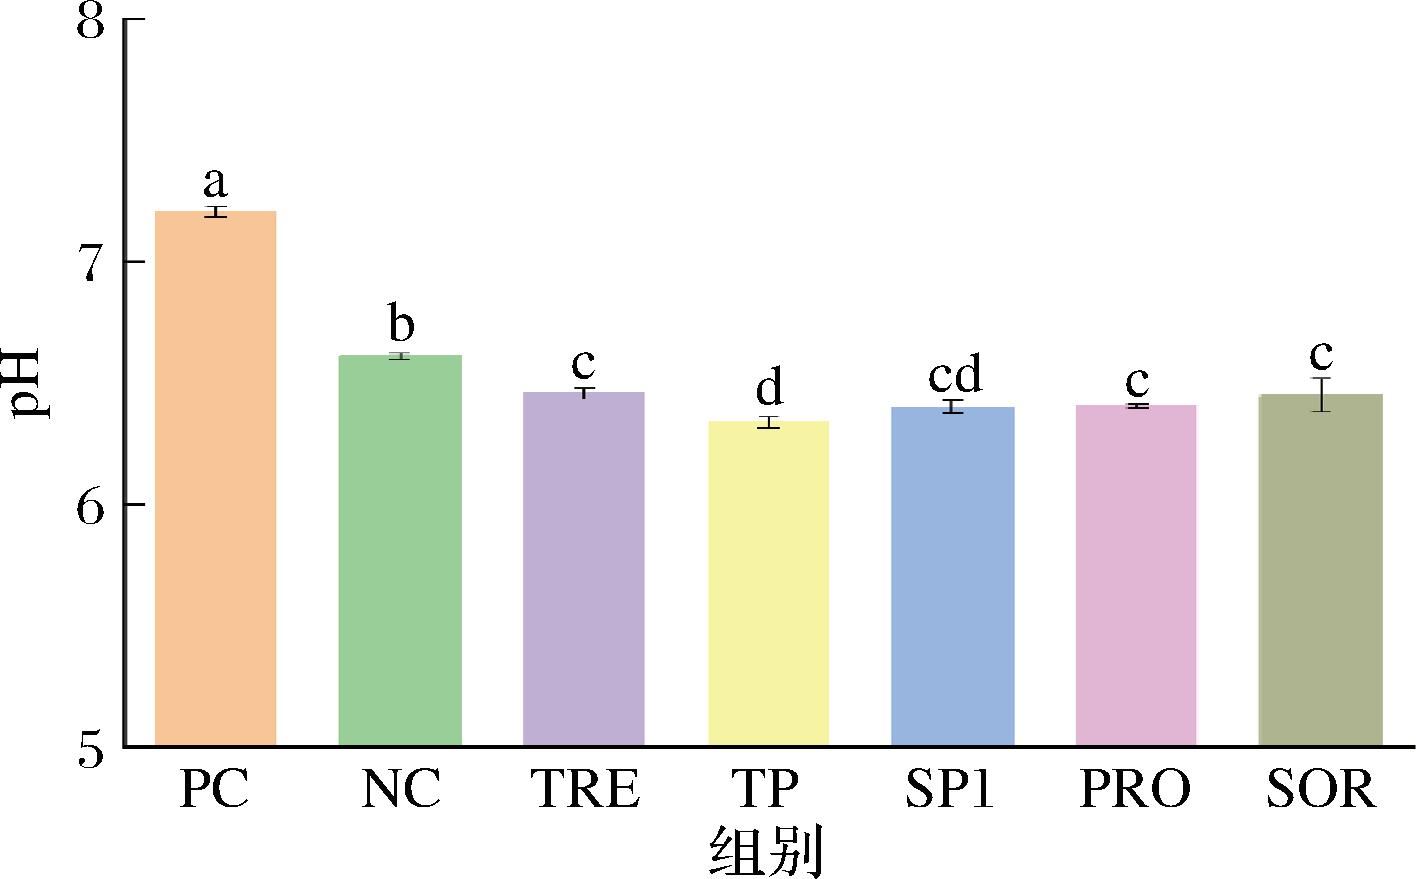
图1 不同抗冻剂对牡蛎肉pH值的影响
Fig.1 Effects of different antifreeze agents on pH value of frozen-thawed oysters
注:小写字母不同表示差异显著(P<0.05)(下同)。
2.2 不同抗冻剂对牡蛎肉持水能力的影响
持水能力是评价冻融水产品品质劣变程度的关键指标,而解冻损失率、离心损失率和蒸煮损失率可系统评价不同抗冻剂对牡蛎持水能力的调控作用。其中,解冻损失率可用于衡量解冻阶段中牡蛎水分流失程度;离心损失率则可反映其保持水的能力;蒸煮损失率则是衡量食品加工环节中水分留存能力的重要参数[21]。由图2-a可知,各处理组与NC组的解冻损失率均存在显著差异, PRO处理组较NC组显著降低了41.71%,且与PC和SOR组没有显著差异,说明PRO在冷冻-解冻过程中汁液流失方面已达到磷酸盐类的保护效果。在离心损失率上(图2-b),PC、TRE、PRO及SOR组均与NC组差异显著,其离心损失率分别降低 43.98%、20.20%、25.51%和33.77%。在蒸煮损失方面(图2-c),PRO组较NC组显著降低37.85%,并与蒸煮损失率最低的SOR组无显著差异。这可能是由于脯氨酸具有较小的分子质量,可以穿透内部肌肉纤维,并且在吸收后还可以在细胞环境中充当冷冻保护剂[22]。综上,抗冻剂的添加可有效提升牡蛎的持水性能。其中,脯氨酸能有效地减少冷冻与解冻过程中的汁液流失,且处理效果与传统商业抗冻剂无显著差异,具备作为牡蛎冻藏过程中抗冻剂的应用潜力。
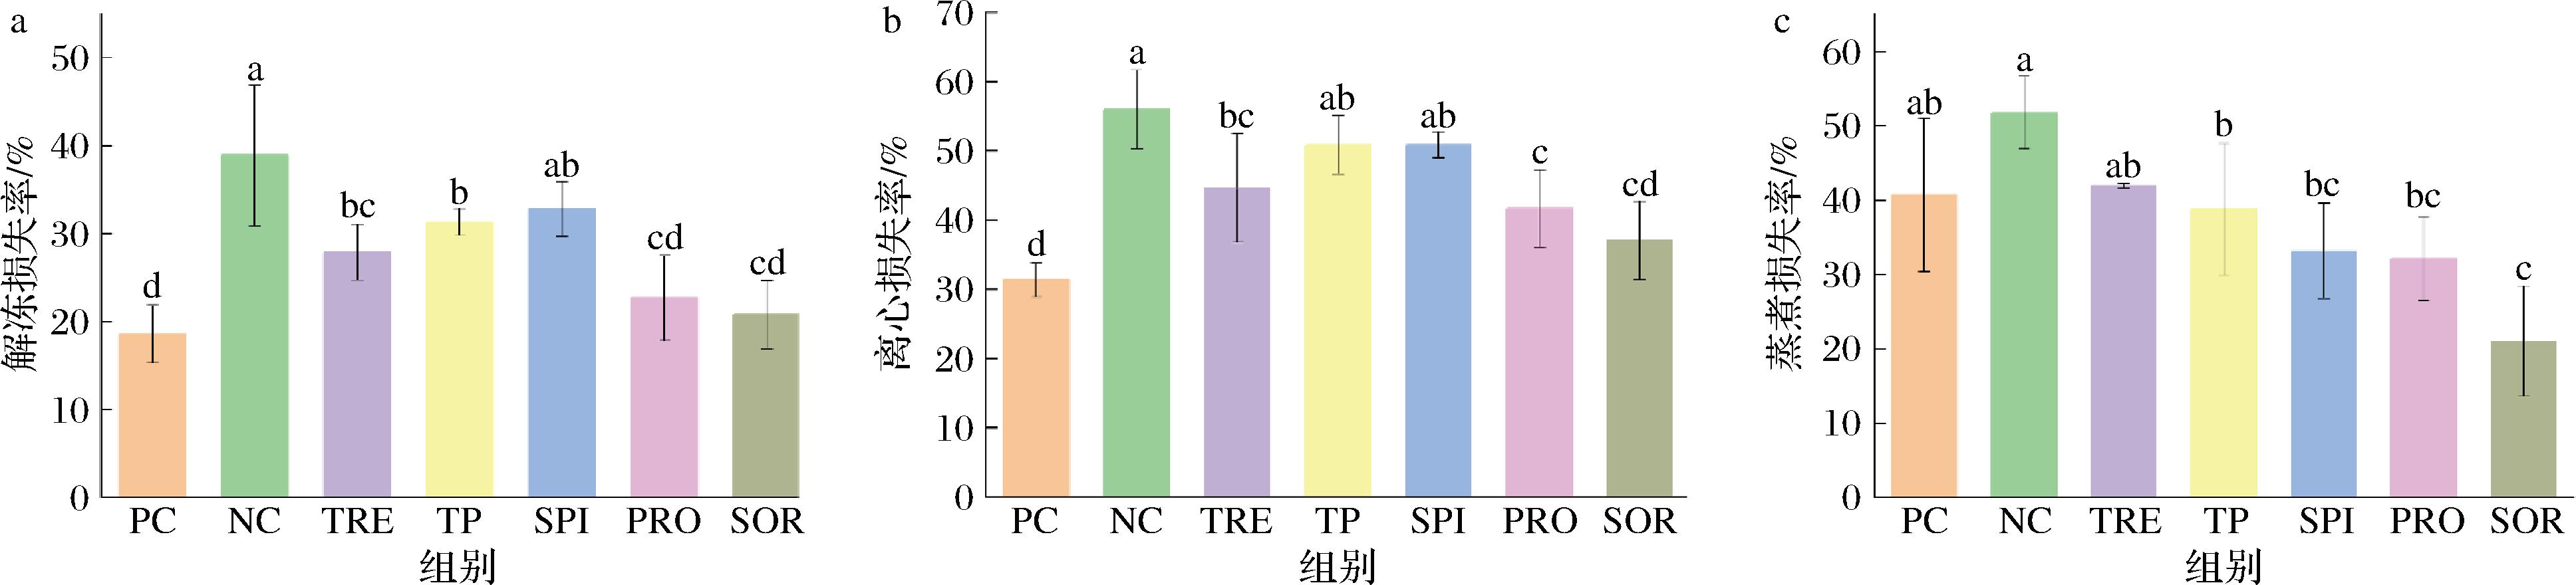
a-解冻损失率;b-离心损失率;c-蒸煮损失率
图2 不同抗冻剂对牡蛎肉持水能力的影响
Fig.2 Effects of different antifreeze agents on water-holding capacity of frozen-thawed oysters
2.3 不同抗冻剂对牡蛎肉色差的影响
色泽作为评价水产品新鲜度及商品价值的核心外观指标,直接影响消费者的购买意愿。牡蛎在冻藏过程中其表面色泽易发生改变,进而降低商品可接受度。图3呈现不同抗冻剂处理对牡蛎表观色泽的影响,各组别色泽差异可结合表1的量化数据进一步分析。由表1可知,TRE处理组的亮度值(L*)为74.57,显著高于其他各处理组,这表明海藻糖对牡蛎的亮白度具有显著的维持作用;TP处理组的红绿值(a*)显著高于其他各处理组,使样品呈现较深的红色,可能与茶多酚自身色泽或肌红蛋白氧化有关[23]。SPI处理组的黄蓝值(b*)显著偏高,推测与大豆分离蛋白自身色泽有关,使其呈现偏黄的色度。白度作为综合性指标,TRE处理组与SPI处理组的白度值显著高于其他组别,且两组间无显著差异,二者在维持牡蛎表观色泽方面优于山梨糖醇等传统商业抗冻剂。此外,PC处理组与NC处理组各色泽指数间均无显著差异,说明其对色泽的保护作用较为有限。综上,从色泽稳定性来看,TRE处理能最大程度地维持牡蛎冷冻后亮白的理想外观。
表1 不同抗冻剂对牡蛎肉色差的影响
Table 1 Effects of different antifreeze agents on color difference of frozen-thawed oysters
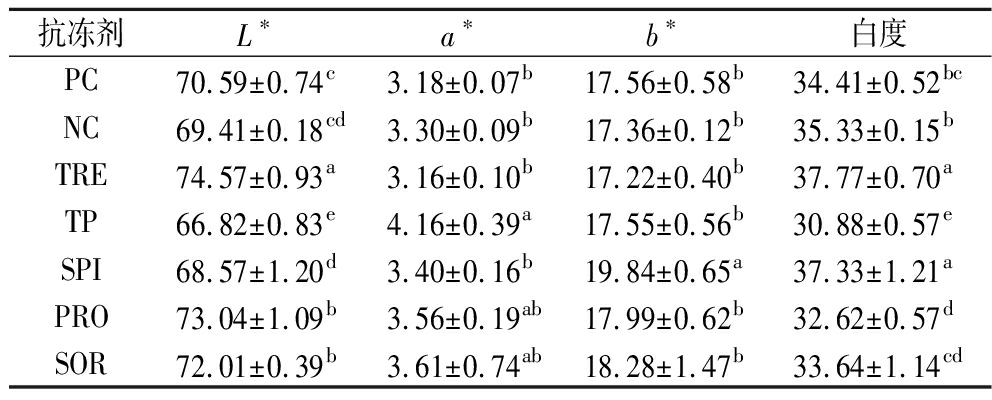
抗冻剂L*a*b*白度PC70.59±0.74c3.18±0.07b17.56±0.58b34.41±0.52bcNC69.41±0.18cd3.30±0.09b17.36±0.12b35.33±0.15bTRE74.57±0.93a3.16±0.10b17.22±0.40b37.77±0.70aTP66.82±0.83e4.16±0.39a17.55±0.56b30.88±0.57eSPI68.57±1.20d3.40±0.16b19.84±0.65a37.33±1.21aPRO73.04±1.09b3.56±0.19ab17.99±0.62b32.62±0.57dSOR72.01±0.39b3.61±0.74ab18.28±1.47b33.64±1.14cd
注:不同的小写字母表示差异显著(P<0.05,表2同)。
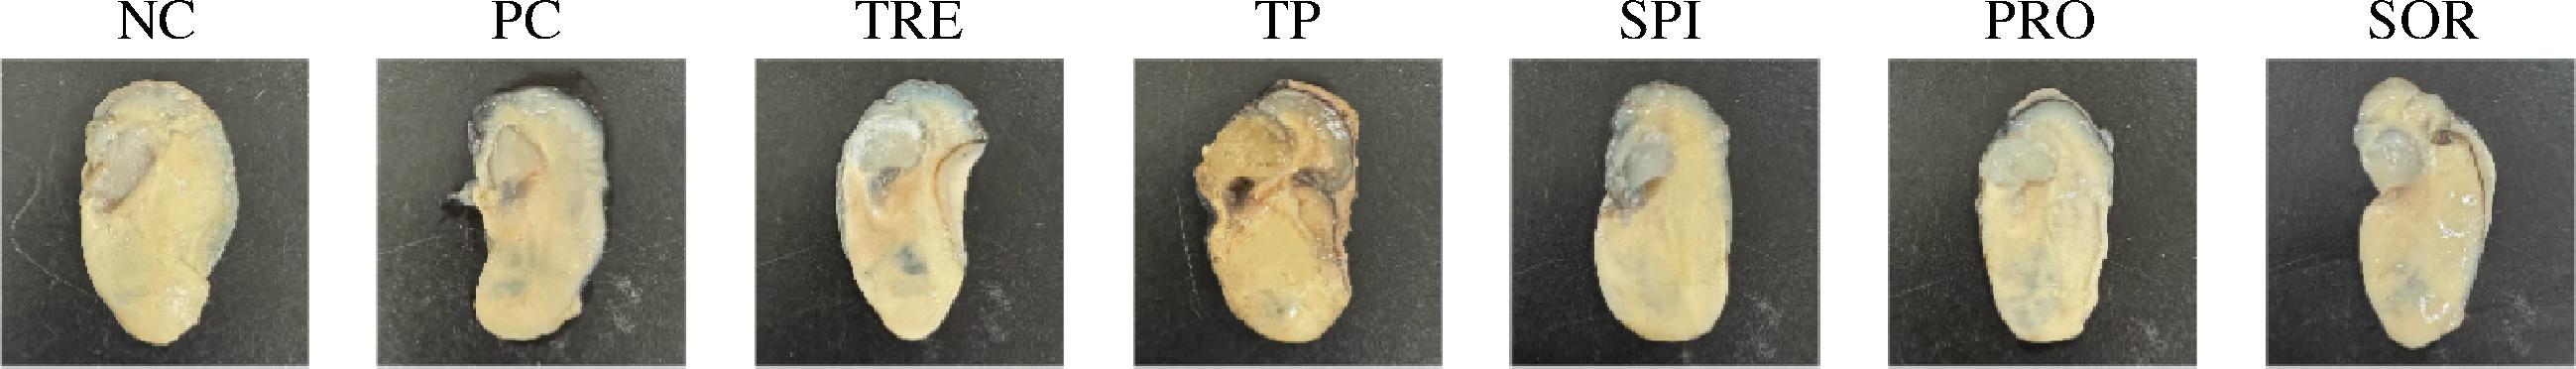
图3 不同抗冻剂对牡蛎肉表观的影响
Fig.3 Effects of different antifreeze agents on appearance of frozen-thawed oysters
2.4 不同抗冻剂对牡蛎肉水分分布的影响
低场核磁技术已广泛应用于食品领域,可快速且精准地分析水产品中的水分分布状态及含量特征,为水产品水分特性的量化评价提供可靠技术支撑。牡蛎中水分的存在方式主要分3种, 其对应的弛豫时间分别为T21、T22和T23。其中T22对应的是不易流动水,其弛豫时间范围为 100~1 000 ms,该形态水分与肌肉组织的结合最为紧密,是反映肌肉组织持水能力的核心指标。由图4可知,TRE处理组的T22峰比例最高,且其平均弛豫时间T2m较短,表明海藻糖能有效地将水分保留在组织内部,形成稳定的持水结构。与未浸泡过抗冻剂的NC组对比,PC、TRE的T2m值分别降低了68.76%和67.46%,且二者没有显著差异,表明TRE在维持肌肉固有持水结构方面与PC具有相近的效果。反复冻融过程会引发冰晶生长与重结晶现象,对肌纤维网状结构造成机械损伤,削弱其水分结合能力,促使水分向外迁移,导致自由水比例上升[24]。TRE处理组能够通过稳定蛋白质结构,从而有效缓解冻融引起的水分迁移与流失,从而增强牡蛎的保水性能。
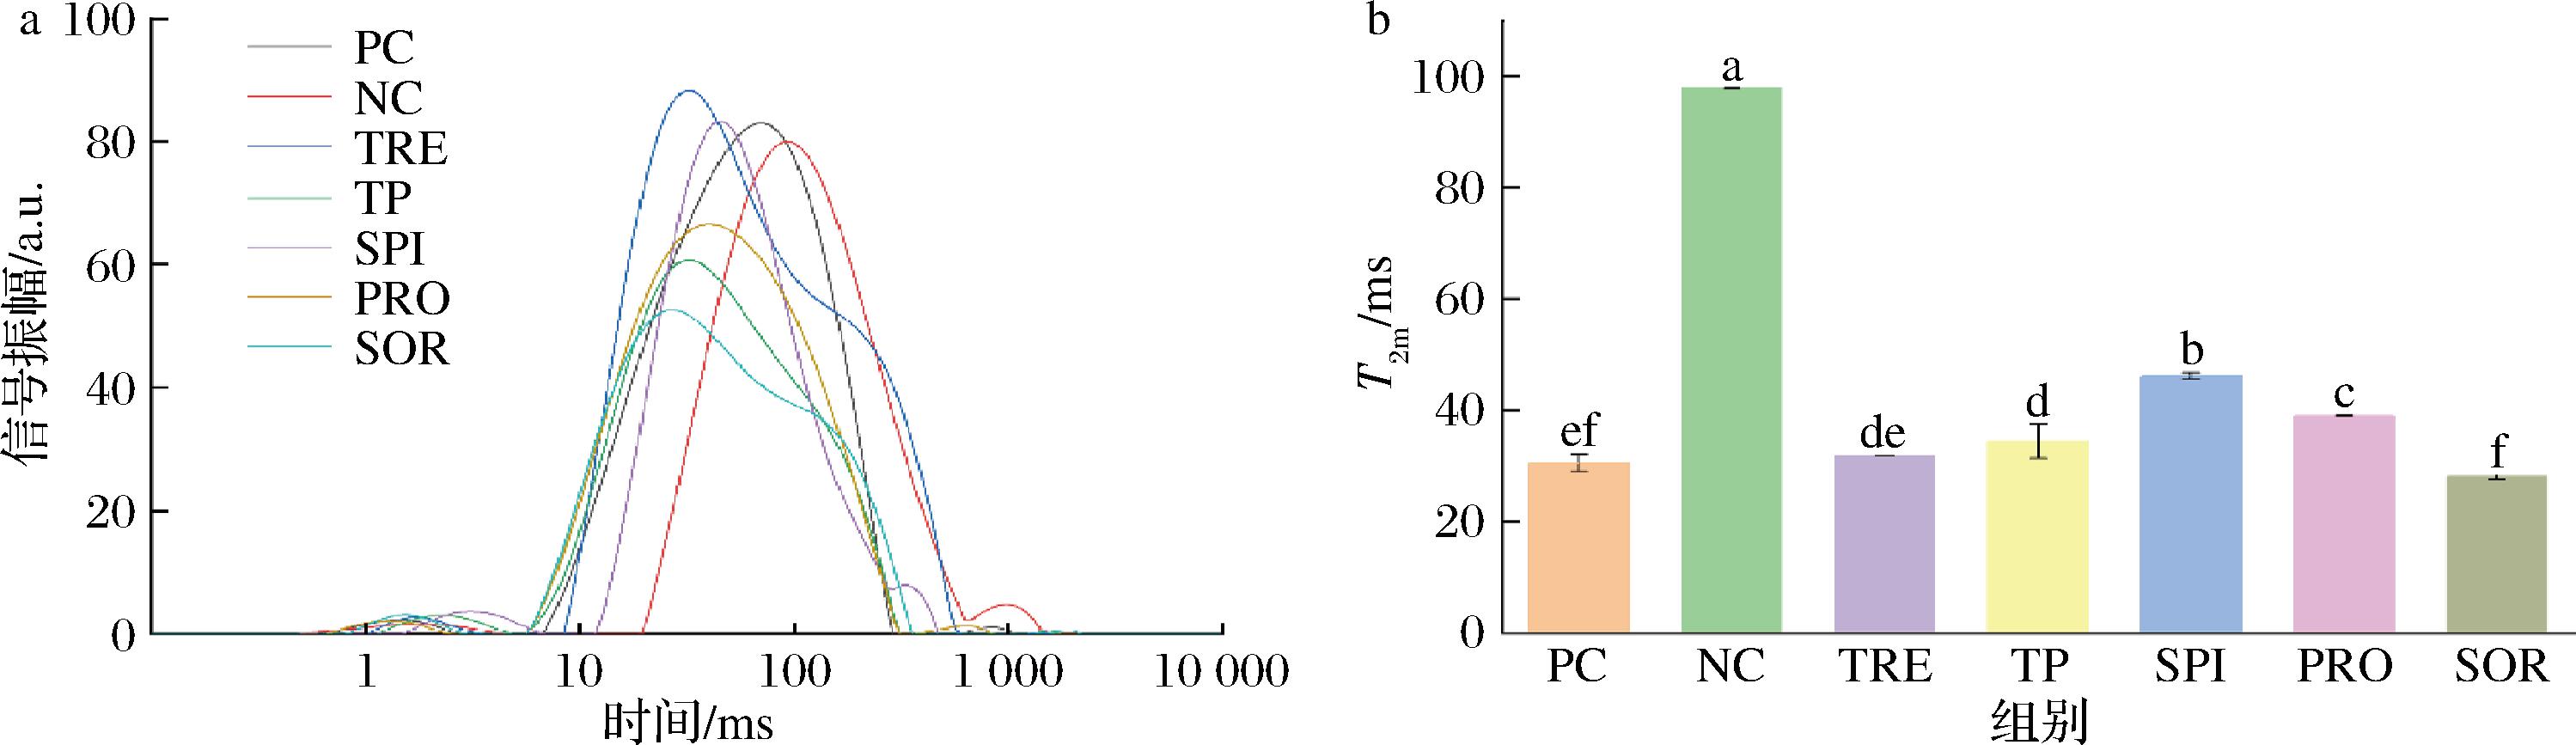
a-横向弛豫时间(T2)分布图谱;b-加权平均弛豫时间(T2m)
图4 不同抗冻剂对牡蛎肉水分分布的影响
Fig.4 Effects of different antifreeze agents on water distribution of frozen-thawed oysters
2.5 不同抗冻剂对牡蛎肉质构的影响
质构特性是评价水产品食用品质的重要指标之一。如表2所示,在闭壳肌部位,各处理组与对照组在闭壳肌的硬度、弹性、内聚性及咀嚼性等指标上均未呈现显著差异,说明抗冻剂对闭壳肌质构特性的调控作用在此指标上呈现相对有限,因此需结合微观结构观测的技术手段进行进一步分析。与之相比,抗冻剂对腹部组织的质构特性影响更为明显。其中,PRO处理组表现出最优的质构维持效果,其硬度与咀嚼性均显著高于NC组,表明PRO能有效维持腹部组织的紧实质地。SOR处理组与NC组的咀嚼性均处于最低水平。腹部组织质构的显著劣变可能与冻融循环导致的水分迁移和蛋白质网络结构破坏密切相关[25],水分流失进一步破坏蛋白质网络,引发组织松散、质地软化,最终体现为硬度、弹性及咀嚼性显著降低;PRO等处理组,可通过稳定细胞膜结构、抑制蛋白质变性聚集,减少水分迁移与流失,使腹部组织质构特性得到改善。
表2 不同抗冻剂对牡蛎肉质构特性的影响
Table 2 Effects of different antifreeze agents on texture properties of frozen-thawed oysters
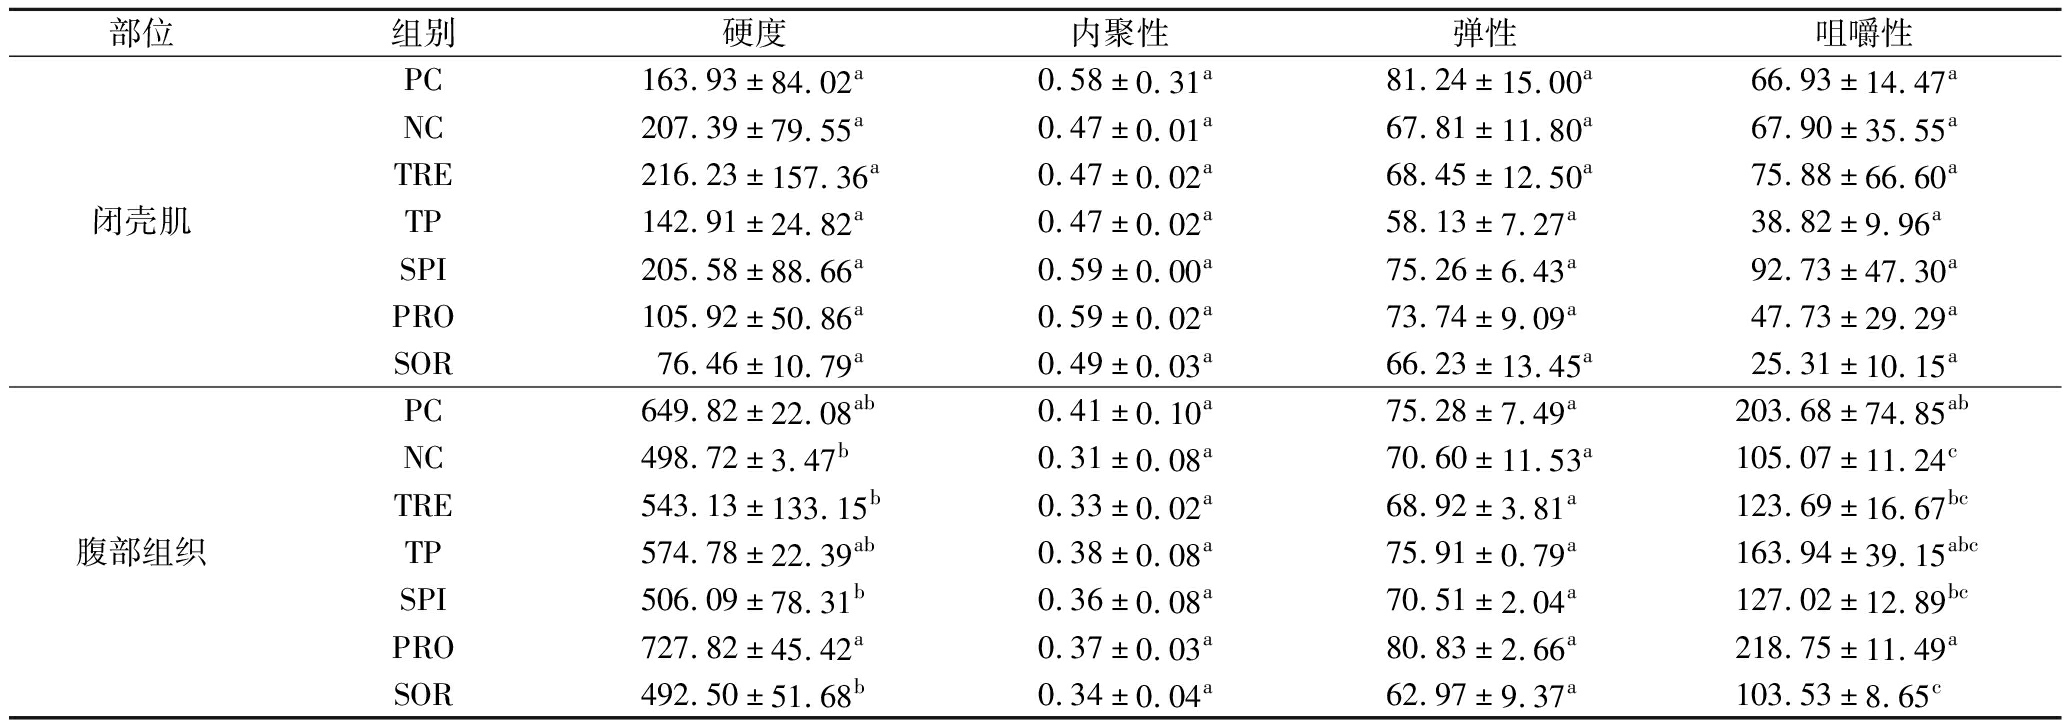
部位组别硬度内聚性弹性咀嚼性闭壳肌PC163.93±84.02a0.58±0.31a81.24±15.00a66.93±14.47aNC207.39±79.55a0.47±0.01a67.81±11.80a67.90±35.55aTRE216.23±157.36a0.47±0.02a68.45±12.50a75.88±66.60aTP142.91±24.82a0.47±0.02a58.13±7.27a38.82±9.96aSPI205.58±88.66a0.59±0.00a75.26±6.43a92.73±47.30aPRO105.92±50.86a0.59±0.02a73.74±9.09a47.73±29.29aSOR76.46±10.79a0.49±0.03a66.23±13.45a25.31±10.15a腹部组织PC649.82±22.08ab0.41±0.10a75.28±7.49a203.68±74.85abNC498.72±3.47b0.31±0.08a70.60±11.53a105.07±11.24cTRE543.13±133.15b0.33±0.02a68.92±3.81a123.69±16.67bcTP574.78±22.39ab0.38±0.08a75.91±0.79a163.94±39.15abcSPI506.09±78.31b0.36±0.08a70.51±2.04a127.02±12.89bcPRO727.82±45.42a0.37±0.03a80.83±2.66a218.75±11.49aSOR492.50±51.68b0.34±0.04a62.97±9.37a103.53±8.65c
2.6 不同抗冻剂对牡蛎闭壳肌微观结构的影响
不同抗冻剂处理并经过3次冻融循环后,牡蛎闭壳肌的微观结构变化如图5所示。NC组的肌纤维结构完整性丧失,呈现出显著的结构松散;其他处理组的肌肉则出现不同程度的块状化,且肌原纤维间可见因冰晶挤压而形成的缝隙,这可能是由于冷冻过程中组织内水分形成的冰晶,冰晶生长对肌纤维产生机械挤压,导致结构被破坏,出现缝隙。TP组肌纤维之间的缝隙较其他处理组大,这说明其对肌肉组织的结构保护作用有限,其保鲜机制可能更多体现在抗氧化方面而非抑制冰晶损伤。PRO和TRE处理组能较好地维持肌肉纤维之间的紧密性与完整性。这可能是因为在冷冻过程中,细胞外介质会率先形成冰晶,这导致未被冻结的细胞外液溶质浓度上升,从而引发渗透压失衡,肌纤维开始脱水,从而降低了细胞内冰点并增大了细胞外冰晶[26]。因此经过脯氨酸和海藻糖处理,在膜和蛋白质表面附近可能会浓缩水分子,从而保护它们在冷冻过程中免受损坏[27]。PRO和TRE组因肌纤维结构完整,能有效保留组织内水分,减少冻藏期间冰晶对肌纤维的损伤,进而维持闭壳肌的质构特性,从而维持冻藏牡蛎的品质。
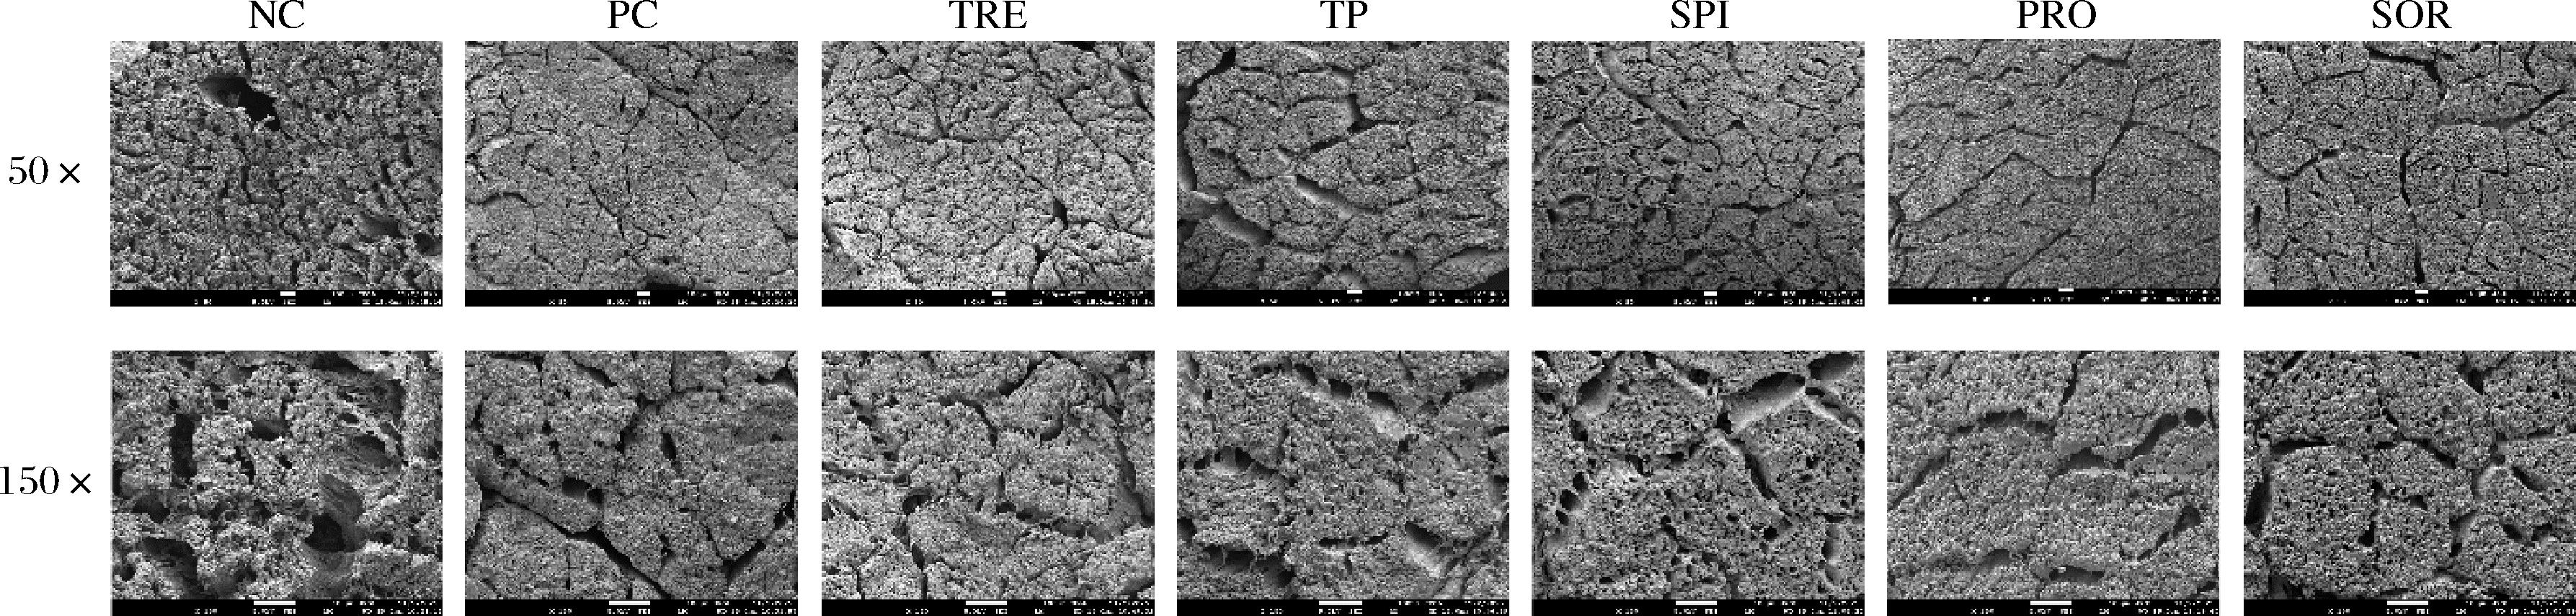
图5 不同抗冻剂对牡蛎闭壳肌微观结构的影响
Fig.5 Effects of different antifreeze agents on microstructure of frozen-thawed oyster adductor muscles
2.7 不同抗冻剂对蛋白质氧化的影响
总巯基含量是评估蛋白质氧化程度的重要指标,其含量越高,表明蛋白质中巯基被氧化形成二硫键的程度越低。如图6-a所示,经3次冻融循环后,NC组的总巯基含量显著低于各处理组。其中,TRE与TP处理组的总巯基含量分别较NC组显著提高58.85%和60.78%。巯基含量的降低通常是由于半胱氨酸残基的硫醇基团氧化或二硫键交换反应,导致肌肉蛋白质变性、聚集及二硫键的形成[28]。而TRE与TP处理能有效抑制这一过程,海藻糖够通过“水合排斥”作用在蛋白质表面形成水合层以维持其天然构象,进而抑制其聚集与变性;茶多酚则通过清除自由基,减少半胱氨酸硫醇基团的氧化损伤,从而保护蛋白质内部巯基不被破坏[29-30]。因此,可以认为其能够通过抑制肌球蛋白在冻藏过程中的氧化及变性降解,从而有效减缓巯基的损失。这与于淑池等[31]研究一致,海藻糖等糖类抗冻剂可通过抑制冰晶形成延缓巯基含量的下降。
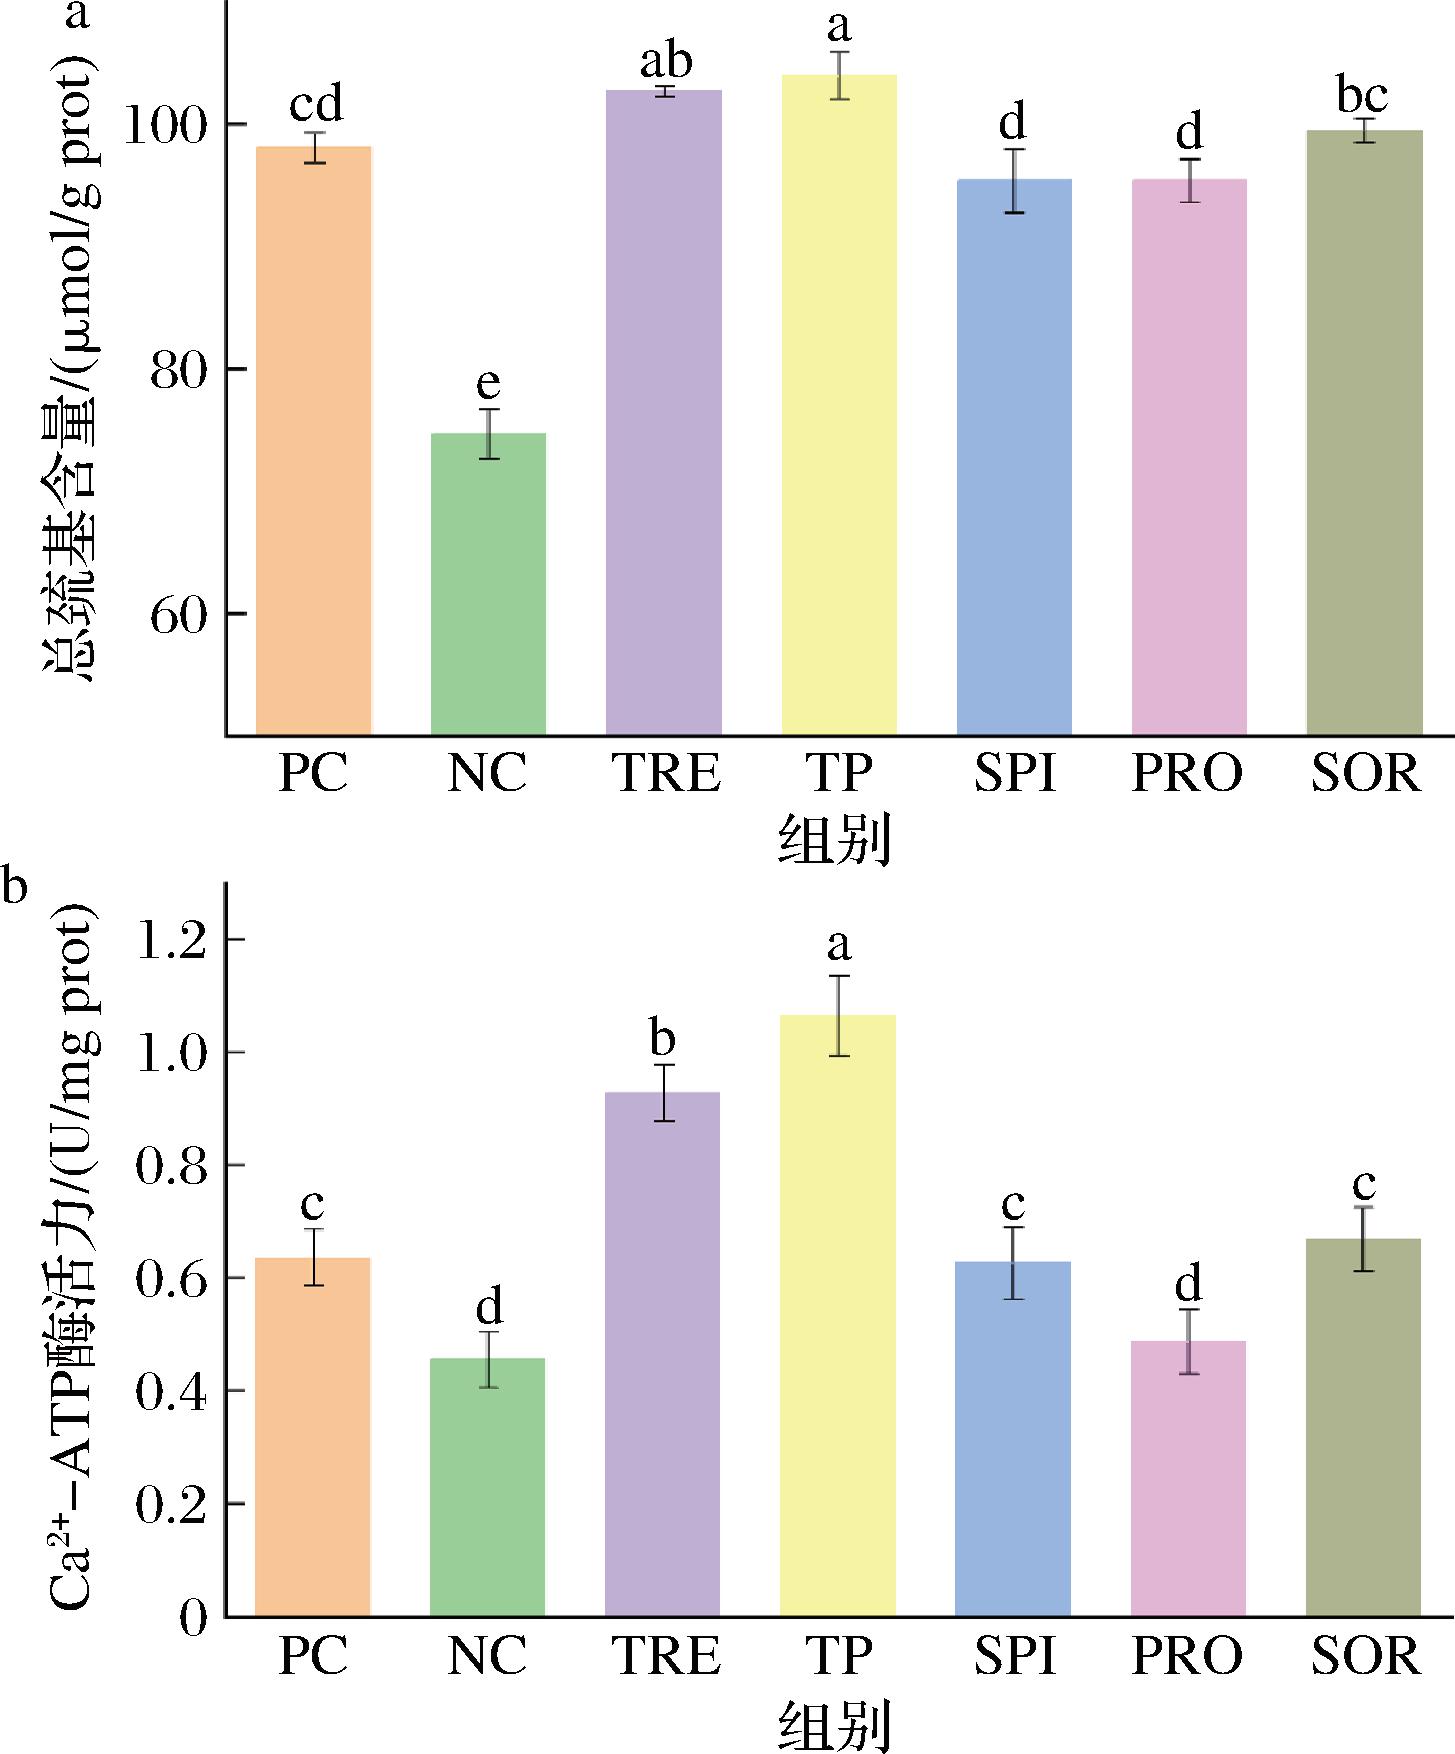
a-总巯基含量;b-Ca2+-ATP酶活力
图6 不同抗冻剂对牡蛎蛋白氧化变性的影响
Fig.6 Effects of different antifreeze agents on protein oxidative denaturation of frozen-thawed oysters
Ca2+-ATP酶活性是反映肌球蛋白结构完整性的重要参数。在冻融过程中,冰晶生长所引起的离子强度升高和蛋白质分子间相互作用增强,均可导致其活性下降。而结构完整的肌球蛋白是形成稳定蛋白网络并锁住水分的关键。抗冻剂的使用能够有效缓解Ca2+-ATP酶活性的下降,说明其在冻融过程中对牡蛎肌原纤维蛋白具有冷冻保护作用。由图6-b可知,与NC组相比,TP和TRE的Ca2+-ATP酶活性显著增加了0.609、0.472 U/mg prot,表明二者能显著减缓肌球蛋白头部的去折叠与聚集,对肌原纤维蛋白具有良好的冷冻保护作用。
2.8 不同抗冻剂对MDA含量的影响
MDA是脂质过氧化反应的特征终产物,其含量可直观反映冻藏过程中牡蛎肌肉组织的氧化劣变水平。如图7所示,相较于NC组,各处理组的MDA含量均呈现显著差异,表明各类抗冻剂能在不同程度上抑制牡蛎在冻融循环过程中的脂质氧化反应,缓解其氧化变质。TP和PRO处理组的MDA含量较NC组低73.93%和59.55%,二者没有显著差异,这与Cheng等[32]的研究结果一致,其研究证实茶多酚可有效抑制冷藏期间冰鲜猪肉的脂质氧化,这也进一步表明 PRO在抑制牡蛎脂质氧化方面可达到与茶多酚相近的效果。推测其作用机制可能与 PRO作为小分子渗透调节物质的特性相关,其可通过稳定牡蛎肌肉细胞膜结构,减少膜内脂质成分暴露,进而抑制脂质氧化。海藻糖作为天然糖类对牡蛎脂质氧化也表现出一定的抑制效果,尽管其MDA含量降低幅度低于PRO组,但仍显著优于 NC组。这可能是因为海藻糖能抑制一部分不饱和脂肪酸的自动氧化[33],从而降低牡蛎冻藏过程中的脂质氧化程度。
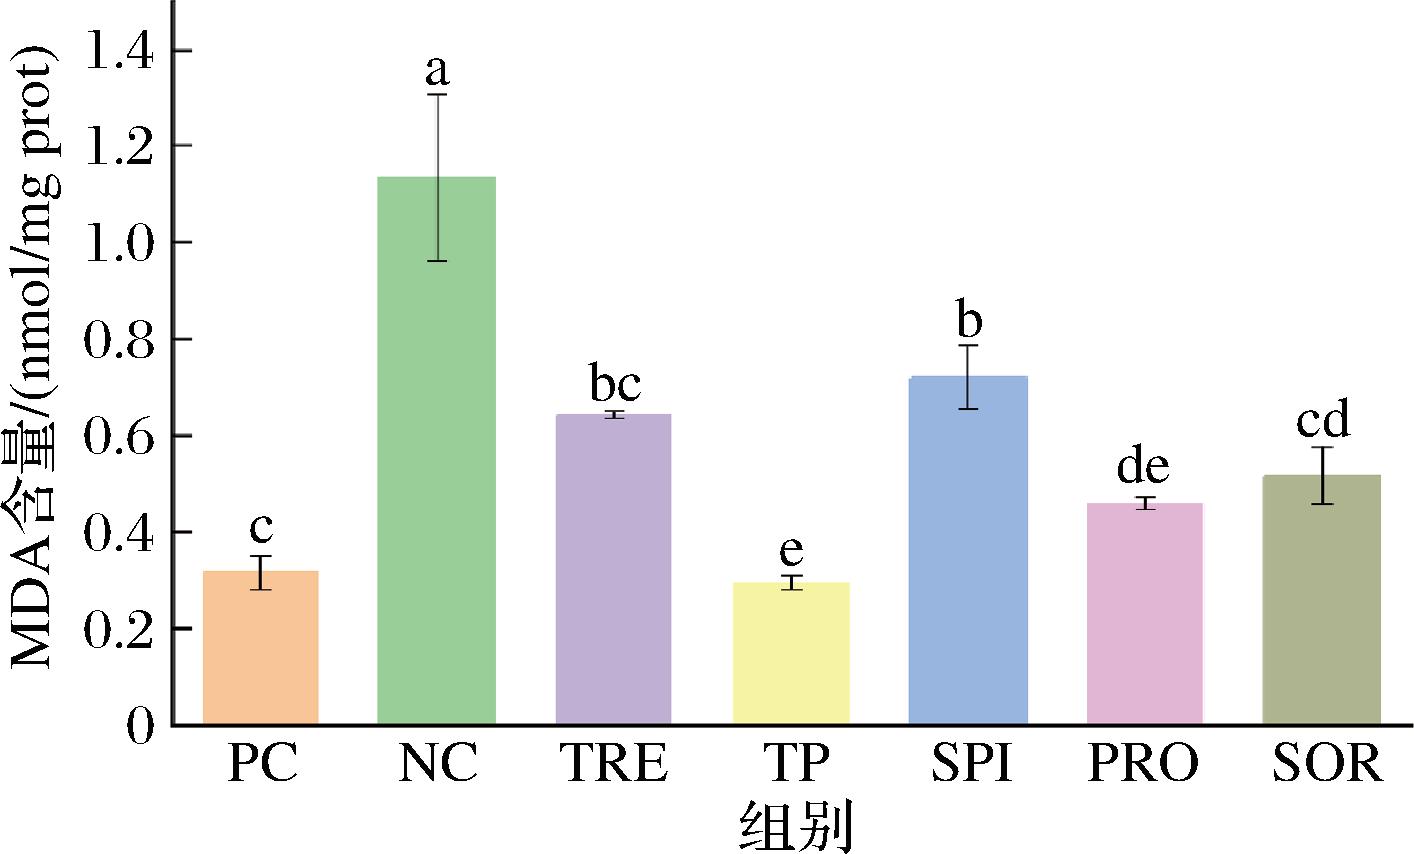
图7 不同抗冻剂对MDA含量的影响
Fig.7 Effects of different antifreeze agents on MDA content of frozen-thawed oysters
2.9 不同抗冻剂处理后冻牡蛎肉品质指标的相关性分析
为明确不同抗冻剂处理对冻融牡蛎肉品质的调控机制,本研究对关键品质指标进行相关性分析。如图8所示,解冻损失率与离心损失率均与水分流动性指标T2m呈现出极强的负相关性,T2m值越大,表明水分的自由度越高,水分子流动性的增加直接导致宏观持水能力的下降。当肌肉组织在冻融过程中受损时,其对水分的束缚能力减弱,部分不易流动水转化为自由水,从而在解冻和离心过程中更易流失。
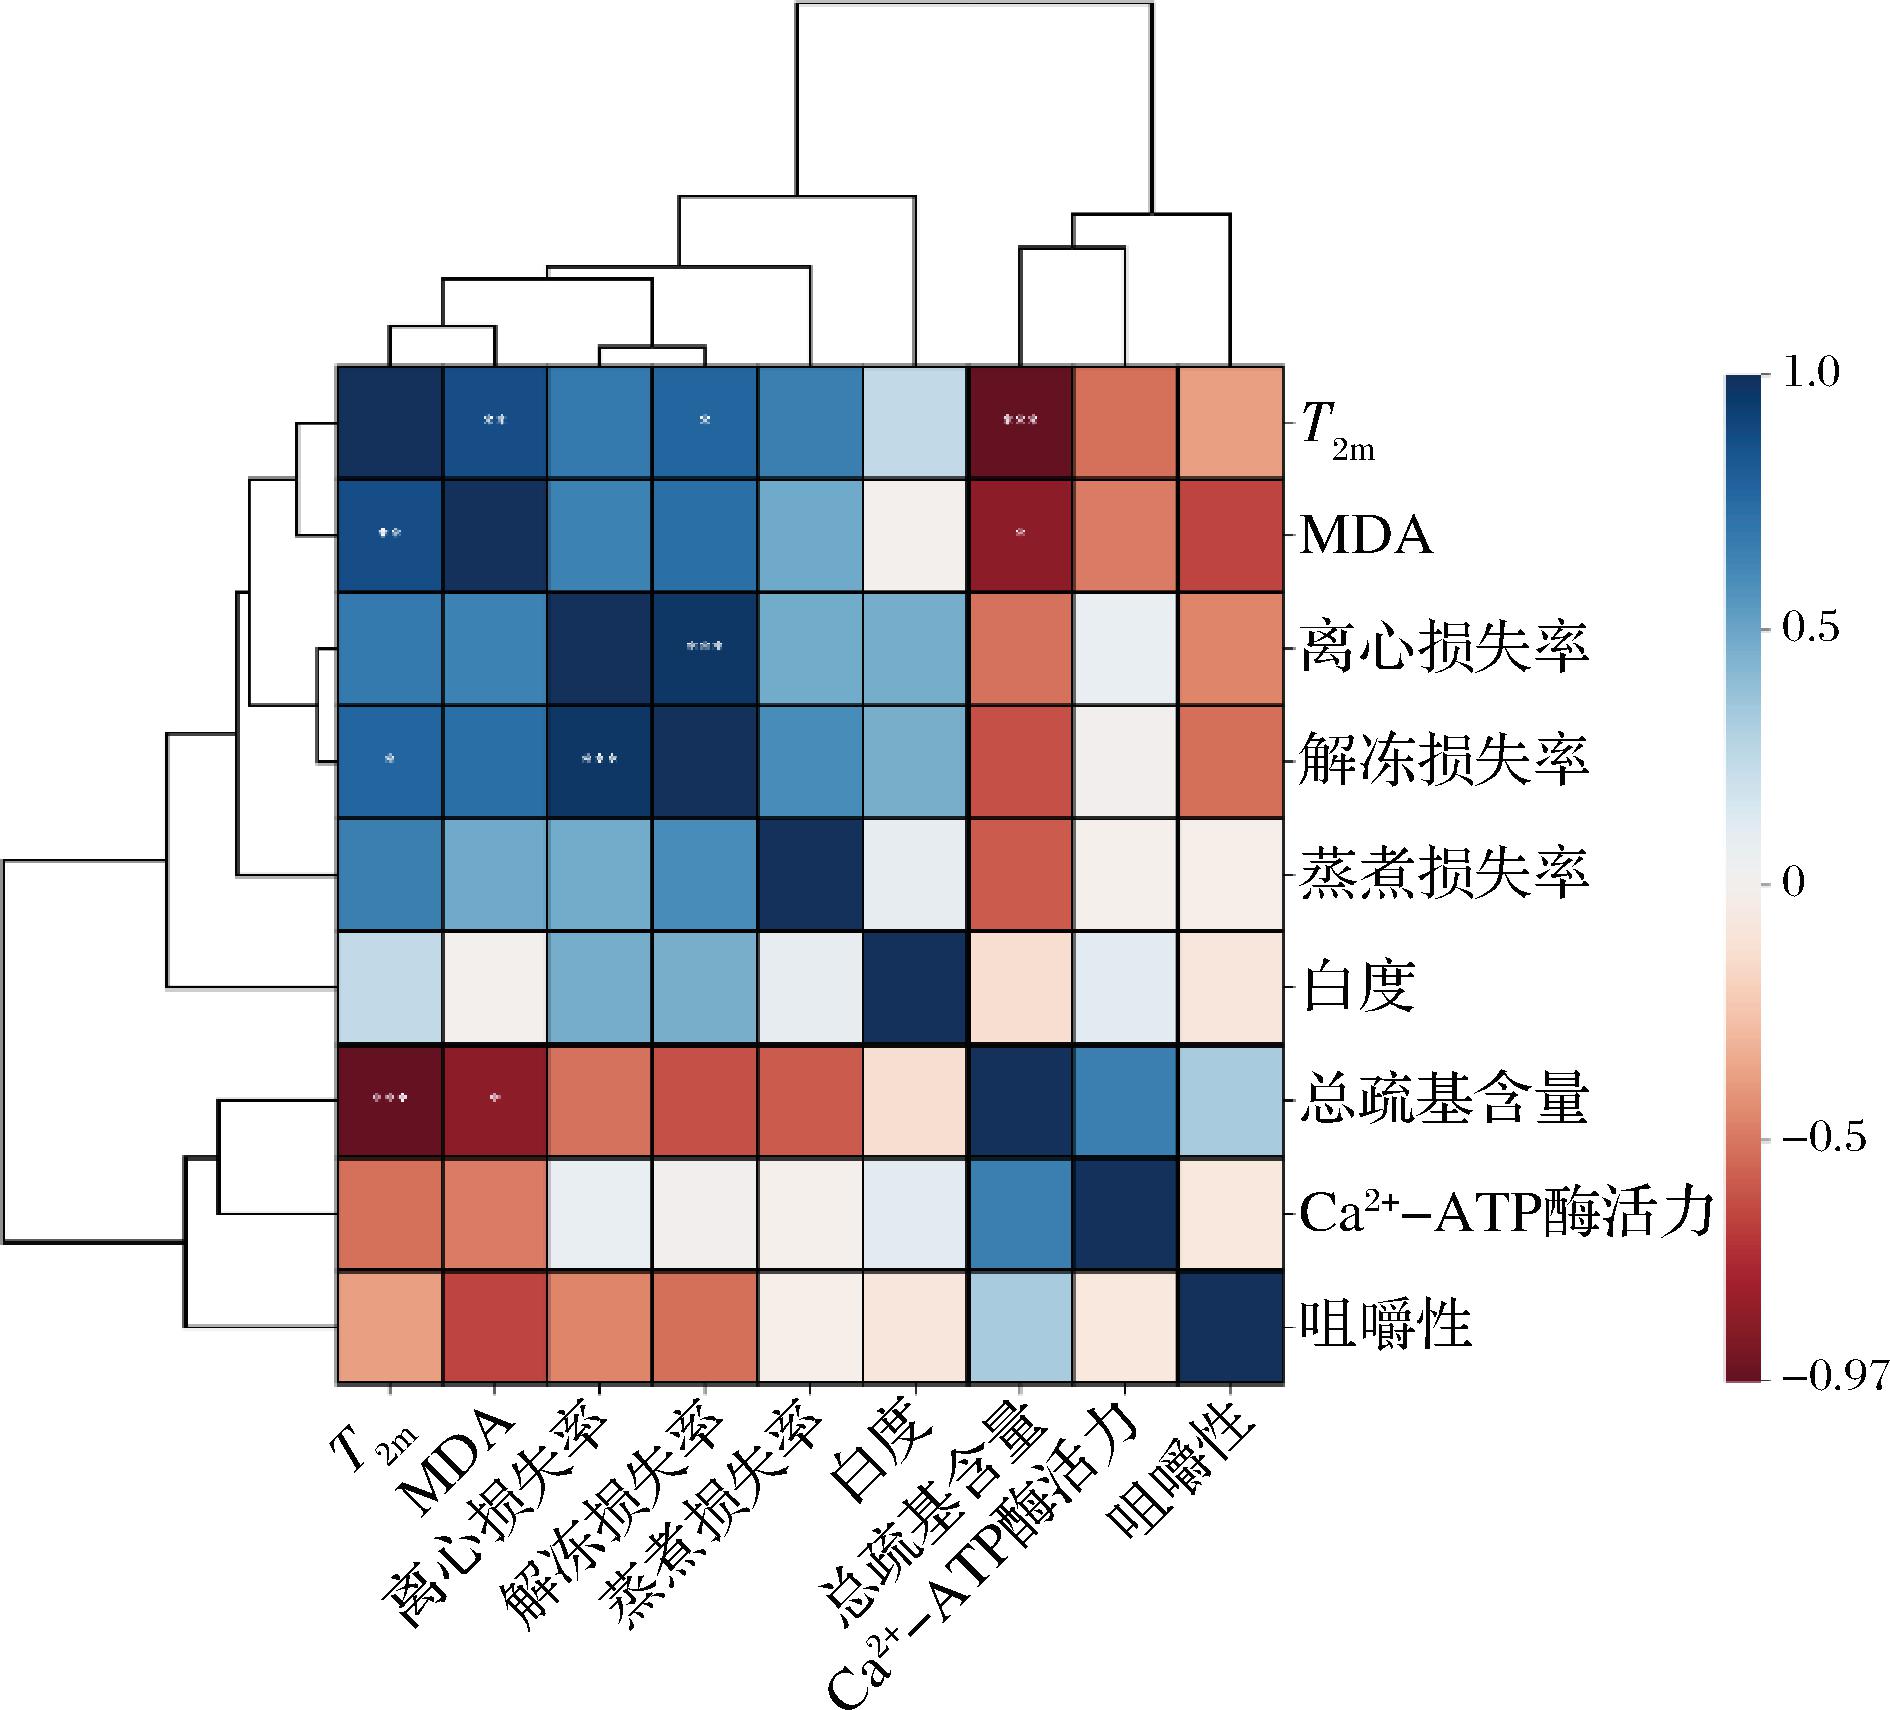
图8 不同抗冻剂处理后冻牡蛎肉品质指标的相关性分析
Fig.8 Correlation analysis of quality indicators of frozen oyster meat treated with different antifreeze agents
脂质与蛋白质氧化是品质劣变的关键。MDA含量与总巯基含量、Ca2+-ATP酶活性及白度等多个指标均呈负相关,这表明脂质氧化与蛋白质氧化之间存在密切的协同关系[34]。脂质氧化产生的活性物质会攻击蛋白质分子,导致其巯基氧化和二硫键形成,进而引起肌球蛋白等关键蛋白变性。蛋白质的氧化变性不仅削弱了其功能特性,还破坏了肌肉组织的三维网络结构,最终导致持水性降低、质地劣化和色泽变暗,这与Du等[35]的研究结果一致。综上,海藻糖和脯氨酸对牡蛎的冷冻保护效能通过抑制脂质-蛋白质协同氧化、维持肌纤维微观结构完整,降低T2m值及水分流失率,最终提升产品宏观品质。
3 结论
本研究系统比较了6种抗冻剂对冻融牡蛎肉品质的影响。结果表明,TRE与 PRO处理组在维持牡蛎色泽、质构、水分分布及抑制蛋白质与脂质氧化方面,表现出最优的综合抗冻保水效能。具体而言,TRE处理使牡蛎肌原纤维蛋白的Ca2+-ATP酶活性与总巯基含量分别提升103.51%和58.85%。PRO处理则使MDA含量降低59.55%。二者均能显著降低解冻与离心损失率,并提高牡蛎中不易流动水的比例、有效抑制水分流失。综上,海藻糖与脯氨酸通过抑制氧化变性-稳定蛋白质结构-优化水分分布的协同作用,显著延缓冻融循环引发的牡蛎品质劣变。二者均有绿色、高效的特点,有望替代磷酸盐或山梨糖醇等传统抗冻剂,应用于冷冻牡蛎的保鲜中。本研究为冷冻牡蛎抗冻剂筛选提供理论支撑,对推动牡蛎保鲜技术升级与产业效益提升具有重要意义。未来工作可基于二者在作用机制上的互补性,探索其复配应用的协同效应,并进行剂量优化与规模化验证。
[1] Tian J, Walayat N, Ding Y T, et al.The role of trifunctional cryoprotectants in the frozen storage of aquatic foods:Recent developments and future recommendations[J].Comprehensive Reviews in Food Science and Food Safety, 2022, 21(1):321-339.
[2] Dong S L, Niu Y B, Wei H M, et al.Effect of super-chilling storage on maintenance of quality and freshness of the Pacific oyster (Crassostrea gigas)[J].Food Quality and Safety, 2023, 7:fyad008.
[3] Liu Z L, Yang W G, Wei H M, et al.The mechanisms and applications of cryoprotectants in aquatic products:An overview[J].Food Chemistry, 2023, 408:135202.
[4] Dou M J, Lu C N, Sun Z Q, et al.Natural cryoprotectants combinations of L-proline and trehalose for red blood cells cryopreservation[J].Cryobiology, 2019, 91:23-29.
[5] Fomich M, D A V P, Premadasa U I, et al.Ice recrystallization inhibition activity of soy protein hydrolysates[J].Journal of Agricultural and Food Chemistry, 2023, 71(30):11587-11598.
[6] 高艳婷, 李欢欢, 许腾, 等.茶多酚在肉制品加工与保鲜中的应用研究进展[J].食品与生物技术学报, 2025, 44(6):10-18.Gao Y T, Li H H, Xu T, et al.Research progress in the application of tea polyphenols in meat processing and preservation[J].Journal of Food Science and Biotechnology, 2025, 44(6):10-18.
[7] 苏灵霞. 赖氨酸—山梨糖醇改善鲢鱼鱼糜冻存过程中凝胶性能的机理初探[D].南昌:江西师范大学, 2025.Su L X.Study on mechanism of lysine-sorbitol improving gelproperties of silver carp surimi during frozen storage[D].Nanchang:Jiangxi Normal University, 2025.
[8] Xiong X F, Cao X H, Xu X L, et al.The effects of water migration on fresh food freezing processing[J].Food Engineering Reviews, 2025, 17(4):905-926.
[9] 史羽瑶, 郑尧, 王红丽, 等.抗冻蛋白对冷冻虾夷扇贝闭壳肌持水性及质构特性的影响[J].食品科学, 2022, 43(10):22-28.Shi Y Y, Zheng Y, Wang H L, et al.Effect of antifreeze protein on water-holding capacity and texture of frozen scallop(Patinopecten yessoensis)adductor muscle[J].Food Science, 2022, 43(10):22-28.
[10] 欧妍, 车桂香, 刘莹, 等.茶多酚对冻融循环处理牡蛎中肌原纤维蛋白稳定性的保护效应及作用机理[J].食品工业科技, 2025, 46(21):385-395.Ou Y, Che G X, Liu Y, et al.Protective effect and mechanism of tea polyphenols on the stability of myofibrillar protein in oyster treated by freeze-thaw cycle[J].Science and Technology of Food Industry, 2025, 46(21):385-395.
[11] Chang C K, Kao Y F, Chai H J, et al.Combining soy protein isolate and sorbitol as cryoprotectants for Portuguese oysters (Crassostrea angulata) and investigating the effect on ice crystal damage[J].Food Chemistry, 2025, 478:143619.
[12] Zhang B, Cao H J, Lin H M, et al.Insights into ice-growth inhibition by trehalose and alginate oligosaccharides in peeled Pacific white shrimp (Litopenaeus vannamei) during frozen storage[J].Food Chemistry, 2019, 278:482-490.
[13] Zhang Y J, Wang Y Z, Dong H, et al.Interaction of L-proline with water and ice:Implications for Litopenaeus vannamei cryoprotection during temperature fluctuation[J].Food Chemistry, 2025, 470:142629.
[14] 潘扬, 李涵, 张莹, 等.变温液氮速冻结合复合抗冻剂对冻藏预制调理黄鳝品质的影响[J].食品科学, 2024, 45(20):247-255.Pan Y, Li H, Zhang Y, et al.Effect of variable temperature liquid nitrogen quick-freezing combined with composite cryoprotectant on the quality of frozen prepared Monopterus albus[J].Food Science, 2024, 45(20):247-255.
[15] Li D Y, Liu Z Q, Liu B, et al.Effect of protein oxidation and degradation on texture deterioration of ready-to-eat shrimps during storage[J].Journal of Food Science, 2020, 85(9):2673-2680.
[16] Wang R R, Huang F, Zhang L, et al.Changes in the texture, microstructures, colour and volatile compounds of pork meat loins during superheated steam cooking[J].International Journal of Food Science &Technology, 2019, 54(10):2821-2830.
[17] Liang R, Lin S Y, Chen D, et al.Differentiation of Penaeus vannamei from different thermal processing methods in physico-chemical, flavor and sensory characteristics[J].Food Chemistry, 2022, 378:132092.
[18] 史羽瑶. 抗冻蛋白对虾夷扇贝闭壳肌品质特性的影响及其抗冻机制[D].上海:上海海洋大学, 2022.Shi Y Y.Effect of antifreeze protein on quality characteristics of yesso scallop (Patinopecten yessoensis) adductor muscle and its antifreeze mechanism[D].Shanghai:Shanghai Ocean University, 2022.
[19] 付徐芳, 邓源喜, 杨宁宁, 等.复合磷酸盐在食品工业中的应用进展[J].现代面粉工业, 2020, 34(5):18-22.Fu X F, Deng Y X, Yang N N, et al.Application progress of composite phosphate in food industry[J].Modern Flour Milling Industry, 2020, 34(5):18-22.
[20] Teng X Y, Cong X H, Chen L P, et al.Effect of repeated freeze-thawing on the storage quality of Pacific oyster (Crassostrea gigas)[J].Journal of Food Measurement and Characterization, 2022, 16(6):4641-4649.
[21] Lorentzen G, Hustad A, Lian F, et al.Effect of freezing methods, frozen storage time, and thawing methods on the quality of mildly cooked snow crab (Chionoecetes opilio) clusters[J].LWT, 2020, 123:109103.
[22] Dou M J, Li Y Z, Sun Z Q, et al.L-proline feeding for augmented freeze tolerance of Camponotus japonicus Mayr[J].Science Bulletin, 2019, 64(23):1795-1804.
[23] Yu L X, Jiang Q X, Yu D W, et al.Quality of giant freshwater prawn (Macrobrachium rosenbergii) during the storage at -18 ℃ as affected by different methods of freezing[J].International Journal of Food Properties, 2018, 21(1):2100-2109.
[24] 李佳, 李艳青.茶多酚对反复冻融鱼糜品质的影响[J].中国调味品, 2025, 50(7):55-60;69.Li J, Li Y Q.Effect of tea polyphenols on quality of repeatedly frozen-thawed surimi[J].China Condiment, 2025, 50(7):55-60;69.
[25] 李思宁, 唐善虎, 王柳, 等.冻藏物流过程中制冷故障对生鲜牦牛肉品质的影响[J].食品科学, 2016, 37(10):246-251.Li S N, Tang S H, Wang L, et al.Effect of refrigerating failure during frozen logistics on the quality of fresh yak meat[J].Food Science, 2016, 37(10):246-251.
[26] Yu M H, Marquez-Curtis L A, Elliott J A W.Cryopreservation-induced delayed injury and cell-type-specific responses during the cryopreservation of endothelial cell monolayers[J].Cryobiology, 2024, 115:104857.
[27] 范伟. 不同抗冻剂对鲟鱼冻藏品质的影响及鲟鱼预制菜产品研发[D].大连:大连海洋大学, 2024.Fan W.Effects of different antifreeze agents on frozen storage quality of sturgeon and research and development of sturgeon food during storage[D].Dalian:Dalian Ocean University, 2024.
[28] Zhao J X, Yang R, Liu S Y, et al.Effects of static magnetic field-assisted freeze-thaw technology on the quality of shrimp (Litopenaeus vannamei):Textural characteristics, protein biochemical properties, microstructure[J].Innovative Food Science &Emerging Technologies, 2025, 102:103998.
[29] Murray A, Kilbride P, Gibson M I.Trehalose in cryopreservation.Applications, mechanisms and intracellular delivery opportunities[J].RSC Medicinal Chemistry, 2024, 15(9):2980-2995.
[30] Huang Z L, Wang Q, Cao J, et al.Mechanisms of polyphenols on quality control of aquatic products in storage:A review[J].Critical Reviews in Food Science and Nutrition, 2024, 64(18):6298-6317.
[31] 于淑池, 谢家淑.复合抗冻剂的配方优化及对卵形鲳鲹冻藏品质的影响[J].食品科技, 2020, 45(7):267-274.Yu S C, Xie J S.Optimization of the formulation of composite cryoprotectant and its effects on the quality of frozen Trachinotus ovatus[J].Food Science and Technology, 2020, 45(7):267-274.
[32] Cheng A W, Wan F C, Xu T C, et al.Effect of irradiation and storage time on lipid oxidation of chilled pork[J].Radiation Physics and Chemistry, 2011, 80(3):475-480.
[33] 王乃强, 张艳君, 薛雅莺, 等.海藻糖的性质及应用[J].精细与专用化学品, 2014, 22(1):35-37.Wang N Q, Zhang Y J, Xue Y Y, et al.Properties and applications of trehalose[J].Fine and Specialty Chemicals, 2014, 22(1):35-37.
[34] Hu Y Y, Quan Z Z, Wang Z H, et al.Uncovering quality changes in oysters (Crassostrea hongkongensis) during frozen storage based on lipidomics and proteomics[J].Food Chemistry, 2025, 483:144230.
[35] Du X, Chang P, Tian J Y, et al.Effect of ice structuring protein on the quality, thermal stability and oxidation of mirror carp (Cyprinus carpio L.) induced by freeze-thaw cycles[J].LWT, 2020, 124:109140.