皱纹盘鲍(Haliotis discus Hannai)作为珍贵的海产贝类,不仅是我国传统“海味八珍”之一,也在全球范围内被视为经济价值较高的高端水产品[1]。鲍鱼富含蛋白质,在未经保鲜处理的情况下极易腐败变质,导致商品价值下降,给产业链带来经济损失[2]。因此,采取有效的保鲜技术以延长其保质期至关重要。盐渍作为一种传统的保鲜方式,已广泛应用于鱼类保鲜,但对于贝类保鲜品质的影响尚未明确,因此针对鲍鱼这一典型贝类,研究盐渍处理对其品质的影响具有现实意义。
盐渍处理具有操作简便、成本较低且能显著延长保鲜期的特点[3]。水产品因其含水量高、营养成分丰富,在捕捞后极易发生品质劣变,难以长期保鲜。其中,质地劣变是其品质下降的关键表现之一[4]。其本质是内源性蛋白酶介导的肌肉蛋白降解、肌原纤维结构破坏及水分流失等多因素协同作用的结果。而贝类中广泛存在内源性蛋白酶,其在低温条件下仍具有活性,它们通过水解肌肉蛋白导致贝类软化,从而影响其品质[5],而盐渍处理可以降低水产品的水分活度,调节肌肉组织渗透压,从而抑制酶活力及微生物生长。因此,研究盐渍处理对鲍鱼在冷藏货架期内品质影响具有重要意义。
为延缓水产品贮藏期间的质地劣变与腐败进程,NaCl作为典型的盐类保鲜剂被广泛应用,其可通过与水产品内部的水分进行渗透交换,降低水分活度并抑制微生物生长,从而延缓水产品的腐败变质[6-7]。但近年来,营养学相关研究表明,高钠膳食已被证实是诱发高血压及心血管疾病的重要风险因素[8]。在此背景下,寻找既能维持盐渍保鲜效果又能降低钠含量的替代盐,已成为食品加工与贮藏领域的重要研究方向。在多种替代盐中,KCl的理化性质与NaCl接近,同时能降低高血压及心血管疾病的风险;CaCl2在多项肉类研究中被证实具有改善肉质嫩度并兼具抑制氧化的优点,两者兼具补充矿物元素的营养学优势,被广泛应用于水产品保鲜领域,在鲢鱼[9]、三文鱼[10]、凤尾鱼[11]等鱼类保鲜中显示出良好的品质保持效果。然而,这2种常见替代盐在鲍鱼保鲜中的研究仍较为有限。因此,针对鲍鱼这一典型且经济价值较高的贝类品种,开展相关研究具有重要现实意义。
基于此,本研究以冷藏(0~4 ℃)鲍鱼为对象,系统探究经 NaCl、KCl 与 CaCl2 3种盐类处理后,其在 0~7 d货架期内的品质变化规律,对比不同盐类对鲍鱼质地、色泽等关键品质特性的作用差异。研究结果可为贝类保鲜过程中低钠复合盐的配方筛选与比例优化提供参考。
1 材料与方法
1.1 材料与仪器
鲜活皱纹盘鲍,购于大连市大连湾市场,所选鲍鱼处于快速生长期,平均质量为71.22 g,长度为76.23 mm,购买后将其储存在海水罐中,并于1 h内运送至实验室。NaCl、KCl、CaCl2(均为分析纯),上海国药集团化学试剂有限公司;NaOH(分析纯)、KH2PO4(色谱纯)、K2HPO4(色谱纯),上海麦克林生化科技有限公司;三氯乙酸(trichloroacetic acid,TCA,分析纯),天津市科密欧化学试剂有限公司。
TA-300W质构仪,济南赛成电子科技有限公司;SC-10色彩色差仪,深圳市三恩科技有限公司;PHS-250型pH计,上海雷磁仪器有限公司;SW-CJ-1D超净台,南京昕仪生物科技有限公司;BR4I冷冻离心机,上海赛默飞世尔科技公司。
1.2 实验方法
1.2.1 原料预处理
鲜活鲍鱼去壳去内脏,全部清洗沥干后均匀分为4组,分别置于编号聚乙烯密封袋中,实验组分别以50 g/L NaCl、KCl、CaCl2溶液完全浸没浸泡,对照组直接密封冷藏。所有样本均保存在0~4 ℃环境中。每隔2 d进行1次总蛋白酶活力测定及品质指标分析,持续7 d。
1.2.2 鲍鱼的总蛋白酶活力测定
酶制剂制备:将5 g鲍鱼样品与15 mL缓冲溶液(20 mmol/L磷酸盐,pH 7.6)匀浆2 min。将1 mL提取液与3 mL反应缓冲液(0.2 mol/L Na2HPO4,0.1 mol/L柠檬酸,pH 5.0)混合。混合物在40 ℃预热10 min后,加入1 mL酪蛋白溶液(10 g/L)反应15 min。反应完成后,加入1 mL 575 g/L TCA溶液终止反应。混合物在4 ℃以5 000 r/min 离心10 min,通过Lowry法测定上清液中的肽含量。1个酶活单位(U)定义为40 ℃下1 mg水溶性蛋白1 min水解底物并释放出 1 μmol/L酪氨酸的量。粗酶液中的水溶性蛋白含量由双缩脲法确定。
1.2.3 鲍鱼肌原纤维蛋白的变化
1.2.3.1 肌原纤维蛋白含量测定
肌原纤维蛋白的提取参考Zhang等[12]的方法并略作修改。具体做法为:准确称量3 g鲍鱼样品,加入15 mL预冷的磷酸盐缓冲溶液A(50 mmol/L Na2HPO4,50 mmol/L NaH2PO4,pH 7.5),均质1 min,于4 ℃下 10 000 r/min 离心10 min,弃上清液,重复上述操作。所得沉淀中加入15 mL磷酸盐缓冲溶液 B(50 mmol/L Na2HPO4,50 mmol/L NaH2PO4,0.6 mol/L NaCl,pH 7.5),均质1 min,于4 ℃下10 000 r/min离心10 min,重复上述操作,将2次离心后的上清液合并,即为肌原纤维蛋白溶液。采用BCA法测定肌原纤维蛋白含量。
1.2.3.2 TCA-可溶性寡肽的测定
将6 g样品和6 mL 200 g/L TCA溶液在冰上匀浆,静置20 min后4 ℃、10 000×g离心10 min。上清液中TCA-可溶性寡肽含量采用Folin-酚法进行测定。
1.2.3.3 水溶性羟脯氨酸(hydroxyproline,Hyp)的测定
采用酸水解法测定鲍鱼的Hyp溶出率。准确称取鲍鱼样品0.2 g置于安瓿瓶中,加3 mL 6 mol/L HCl溶液,135 ℃下水解4 h。测定560 nm处的吸光度值,用L-Hyp作标准品绘制标准曲线,根据GB/T 9695.23—2008《肉与肉制品 羟脯氨酸含量》计算水溶性Hyp含量。
1.2.4 鲍鱼的硫代巴比妥酸反应物(thiobarbituric acid reactive substances,TBARS)测定
鲍鱼腹足肌肉中TBARS含量的测定依据GB 5009.181—2016《食品安全国家标准 食品中丙二醛的测定》中的分光光度法,并略作修改。
1.2.5 鲍鱼的微观结构
将鲍鱼腹足肌肉连接贝柱部位纵切成0.5 cm×0.5 cm×0.3 cm的长方体,用石蜡包裹并切片、脱蜡,切片依次用苏木素和伊红(hematoxylin-eosin,H&E)染色,然后脱水封片,采用光学显微镜观察其肌肉纤维结构。
1.2.6 鲍鱼质构的测定
将皱纹盘鲍肌肉切割成1 cm×1 cm×1 cm方块,使用质构仪,利用质地多面剖析(TPA)模式,对鲍鱼肌肉的硬度、弹性和咀嚼性进行测定,参数设定为:P/0.5 探头,测试速度60 mm/min,形变量30%,触发力1.5 N,探头2次测定间隔1 s。
1.2.7 鲍鱼色差的测定
利用便携式色彩色差计测量皱纹盘鲍肌肉的亮度值(L*)、红绿值(a*)和黄蓝值(b*)。
1.3 统计分析
所有实验均平行重复3次,数据以“平均值±标准差”表示。使用SPSS Statistics 27.0软件进行单因素方差分析,P<0.05表示差异显著。相关性分析采用Pearson双尾检验。图表使用Origin 2021软件绘制。
2 结果与分析
2.1 盐种类对鲍鱼总蛋白酶活力的影响
鲍鱼肌肉中的蛋白酶在自溶、蛋白质降解及死后质量变化中起重要作用[13]。如图1所示,4组鲍鱼肌肉的总蛋白酶活力呈先上升后下降的趋势,并在第5 d达到峰值。这一模式反映了鲍鱼死后生理和生化过程变化的复杂性。冷藏初期,组织内的内源性蛋白酶可能被激活,加速蛋白质水解,从而提高总蛋白酶活力[14]。随着冷藏时间的延长,酶的底物耗尽,产物积累,pH值变化与微生物活动的综合作用导致酶活力下降。当冷藏时间相同时,4组鲍鱼肌肉的总蛋白酶活力存在显著差异(P<0.05)。这表明不同类型的盐对总蛋白酶活力影响不同。冷藏至第5天,NaCl组的酶活力为(74.32±0.72)U/g,KCl组为(84.19±1.88)U/g,显著低于对照组[(98.78±1.10)U/g,P<0.05]。而CaCl2组的酶活力为(122.23±3.11)U/g,显著高于其他3组(P<0.05)。研究结果表明,高浓度的Na+和K+可能改变酶活力中心的电荷分布,从而破坏与底物的静电相互作用,进而抑制酶活力。相反,Ca2+可能结合蛋白酶分子的特定位点,诱导构象变化以优化底物结合亲和力。这种结构调整增强了酶活力,使Ca2+成为多种酶(尤其是钙激活蛋白酶)的关键激活因子。
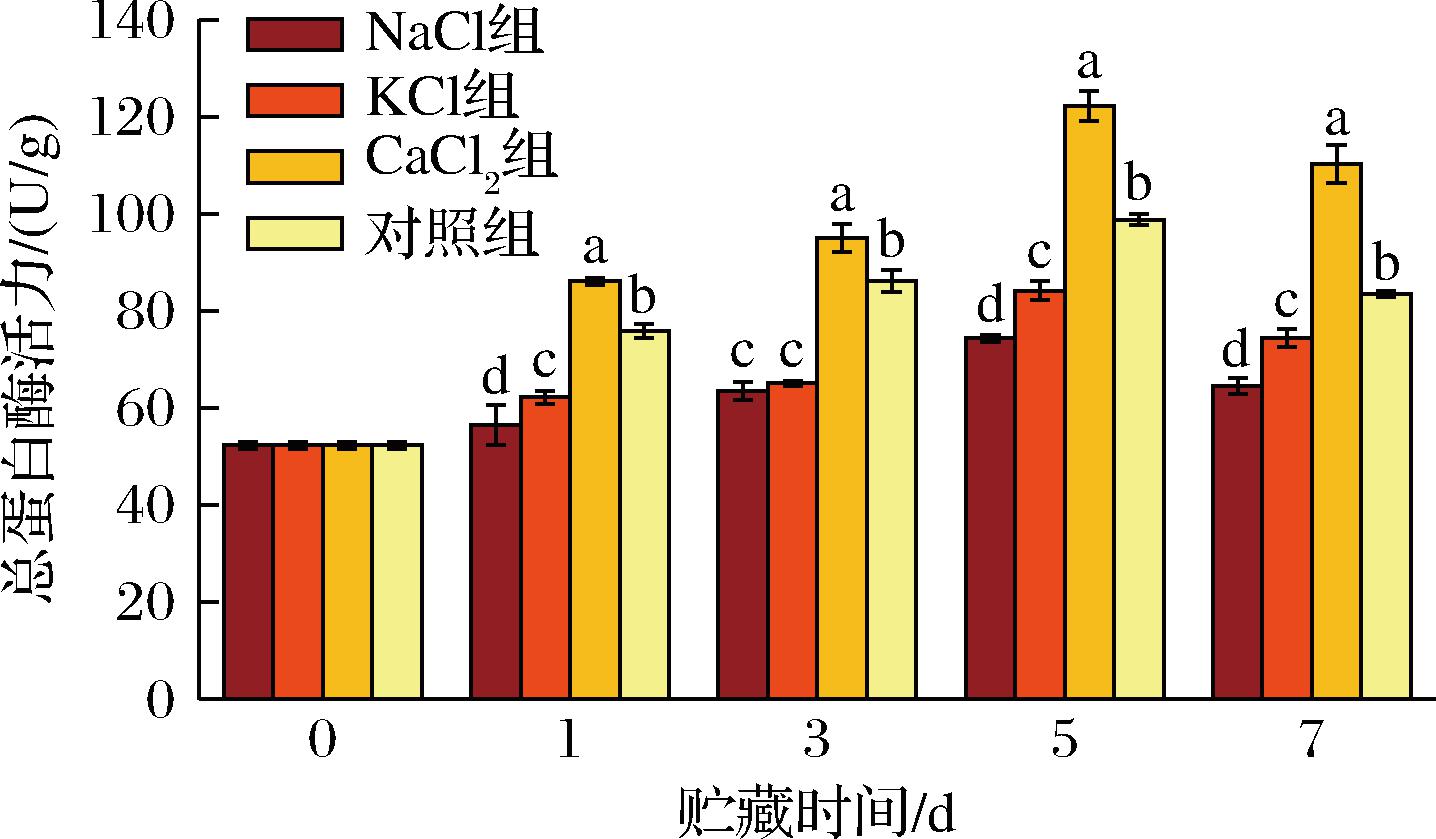
图1 冷藏(0~4 ℃)鲍鱼肌肉的总蛋白酶活力变化
Fig.1 Total protease activity changes of abalone muscle at 0-4 ℃
注:不同小写字母表示相同冷藏时间后不同盐处理组之间存在显著差异(P<0.05)(下同)。
2.2 盐种类对鲍鱼肌原纤维蛋白的影响
2.2.1 肌原纤维蛋白含量变化
通过测定鲍鱼肌肉的肌原纤维蛋白含量,明确不同种类盐通过影响总蛋白酶活力对鲍鱼肌原纤维蛋白的影响。如图2所示,随着冷藏时间的延长,肌原纤维蛋白含量呈下降趋势,表明肌原纤维蛋白被内源性蛋白酶降解。冷藏7 d后,NaCl组的肌原纤维蛋白含量为(43.56±1.50)mg/g,KCl组为(39.32±0.98)mg/g,均显著高于对照组[(33.46±0.79)mg/g,P<0.05],而CaCl2组仅为(28.52±1.56)mg/g。表明添加NaCl和KCl可通过抑制内源性蛋白酶活力来控制鲍鱼肌原纤维蛋白的降解。该结果与Armenteros等[15]的研究发现一致。
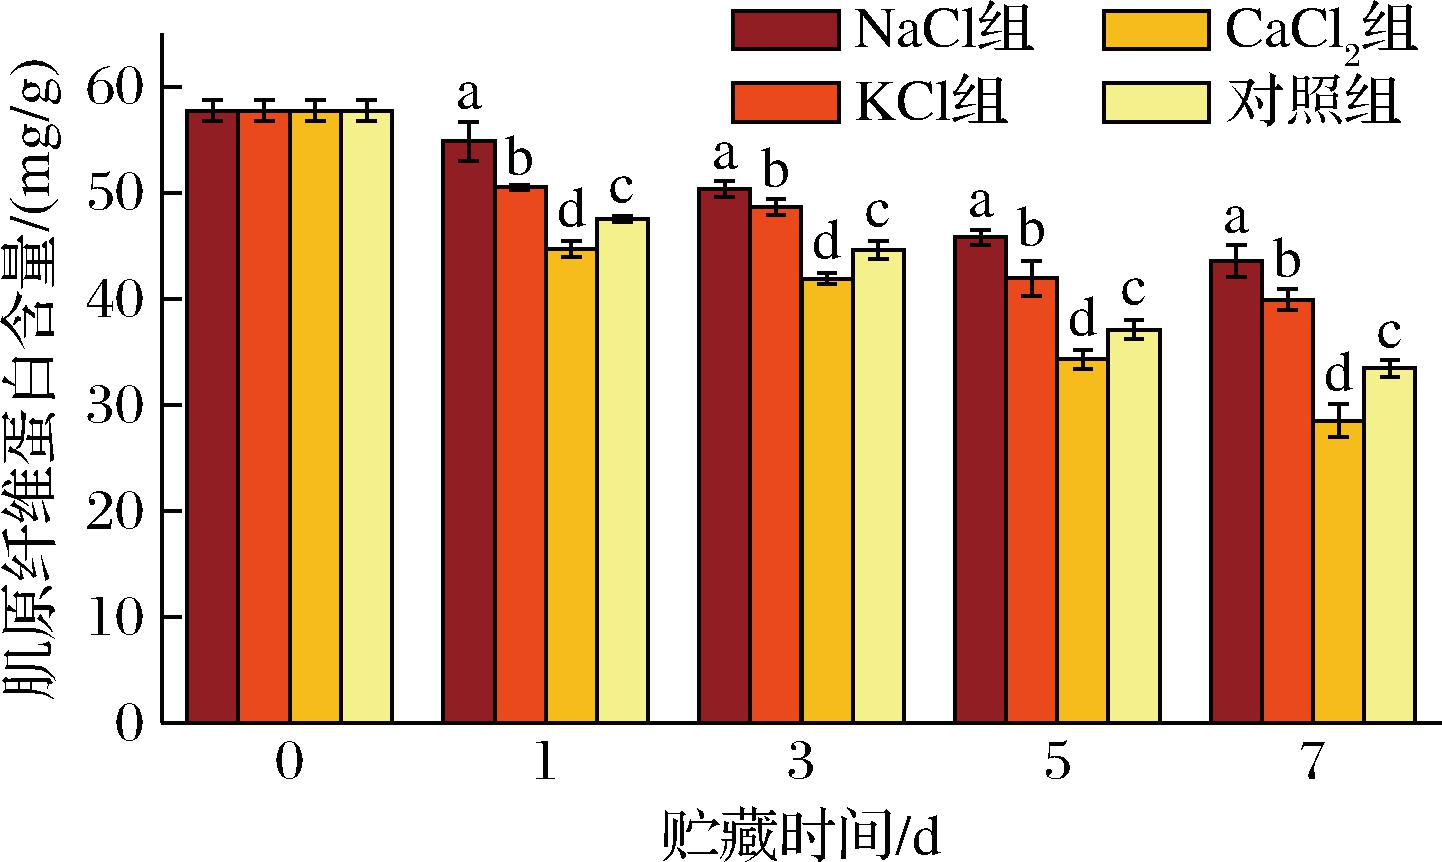
图2 冷藏(0~4 ℃)鲍鱼肌肉肌原纤维蛋白含量变化
Fig.2 Myofibrillar protein solubility changes of abalone muscle at 0-4 ℃
2.2.2 TCA-可溶性寡肽含量变化
通过测定TCA-可溶性寡肽的含量,可以确定鲍鱼在冷藏期间肌肉降解的程度[16]。如图3所示,随着冷藏时间的延长,4组鲍鱼肌肉中TCA-可溶性寡肽的含量均呈上升趋势,表明鲍鱼肌肉蛋白在冷藏过程中持续降解。冷藏前5 d,可溶性寡肽含量显著增加(P<0.05),与酶活力增加呈显著正相关(r=0.80,P<0.05);在冷藏5 d后,随着酶活力下降,蛋白质降解速率相应减缓。此外,在相同冷藏时间下,CaCl2组的TCA-可溶性寡肽含量始终最高,第7天达到(2.46±0.03)mg/g;NaCl组和KCl组的含量分别为(2.07±0.06)、(2.17±0.01)mg/g,均显著低于对照组[(2.28±0.02)mg/g,P<0.05]。综上,NaCl和KCl可通过调节总蛋白酶活力抑制鲍鱼肌肉蛋白的降解,并且NaCl的抑制作用要强于KCl。
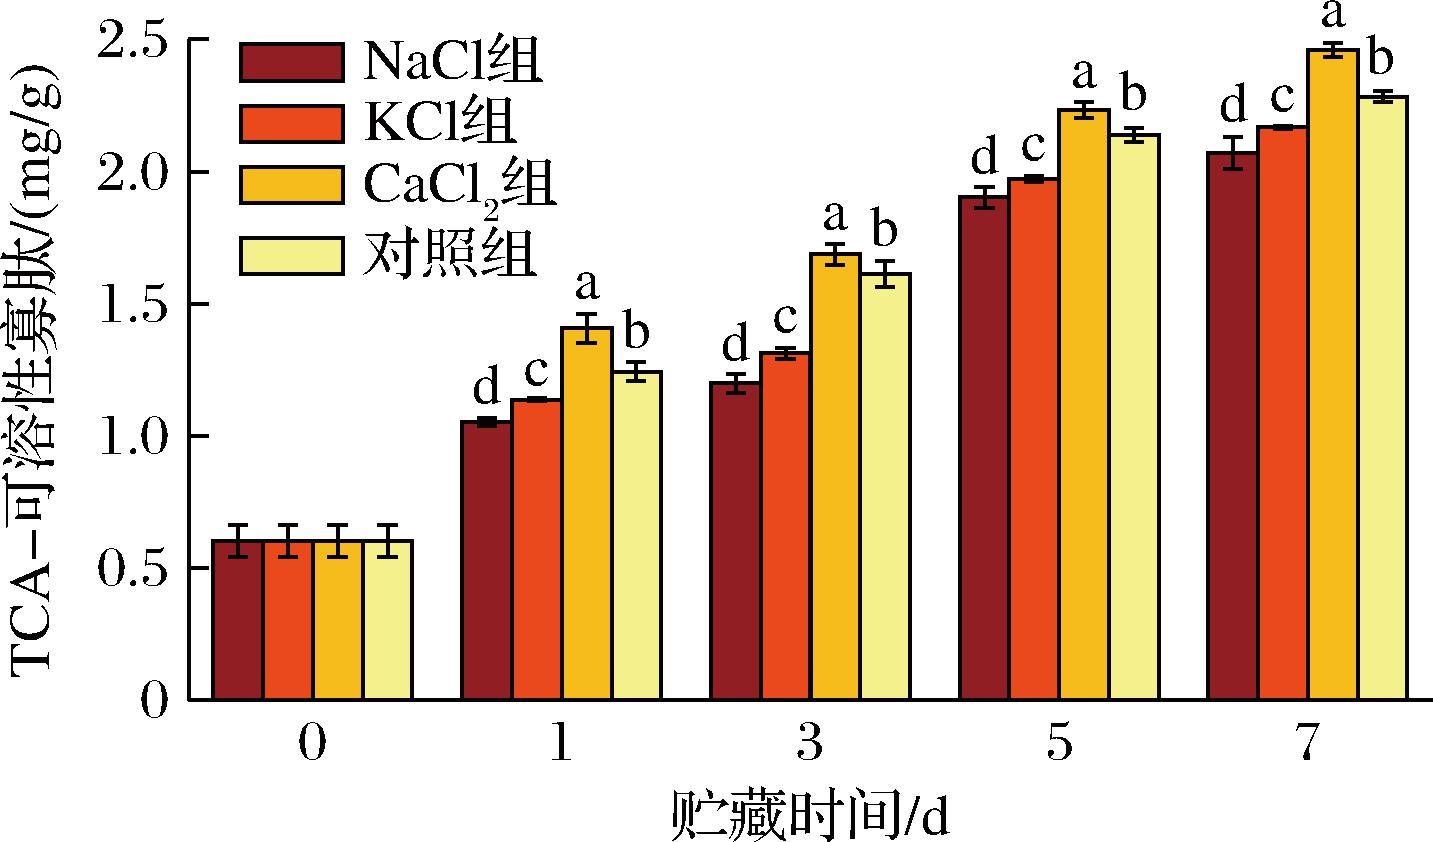
图3 冷藏(0~4 ℃)鲍鱼肌肉的TCA-可溶性寡肽含量变化
Fig.3 TCA-soluble peptides changes of abalone muscle at 0-4 ℃
2.2.3 水溶性Hyp变化
胶原纤维蛋白的变化是水产品肌肉变软的主要原因[17],因此控制冷藏水产品中Hyp的释放速率至关重要。如图4所示,随着冷藏时间延长,对照组Hyp的溶解速率逐渐增加(P<0.05)。作为胶原蛋白特有的氨基酸,Hyp溶解速率的升高表明水不溶性胶原蛋白降解,这证实了内源性蛋白酶可能在冷藏期间诱导鲍鱼肌肉中胶原成分的降解。冷藏7 d后,NaCl组的Hyp溶解速率为(1.79±0.03)%,KCl组为(1.85±0.02)%,均显著低于对照组[(1.96±0.02)%,P<0.05],而CaCl2组的速率显著高于其他3组[(2.09±0.03)%,P<0.05]。结果表明,NaCl和KCl可减轻内源性蛋白酶对胶原纤维蛋白的降解。
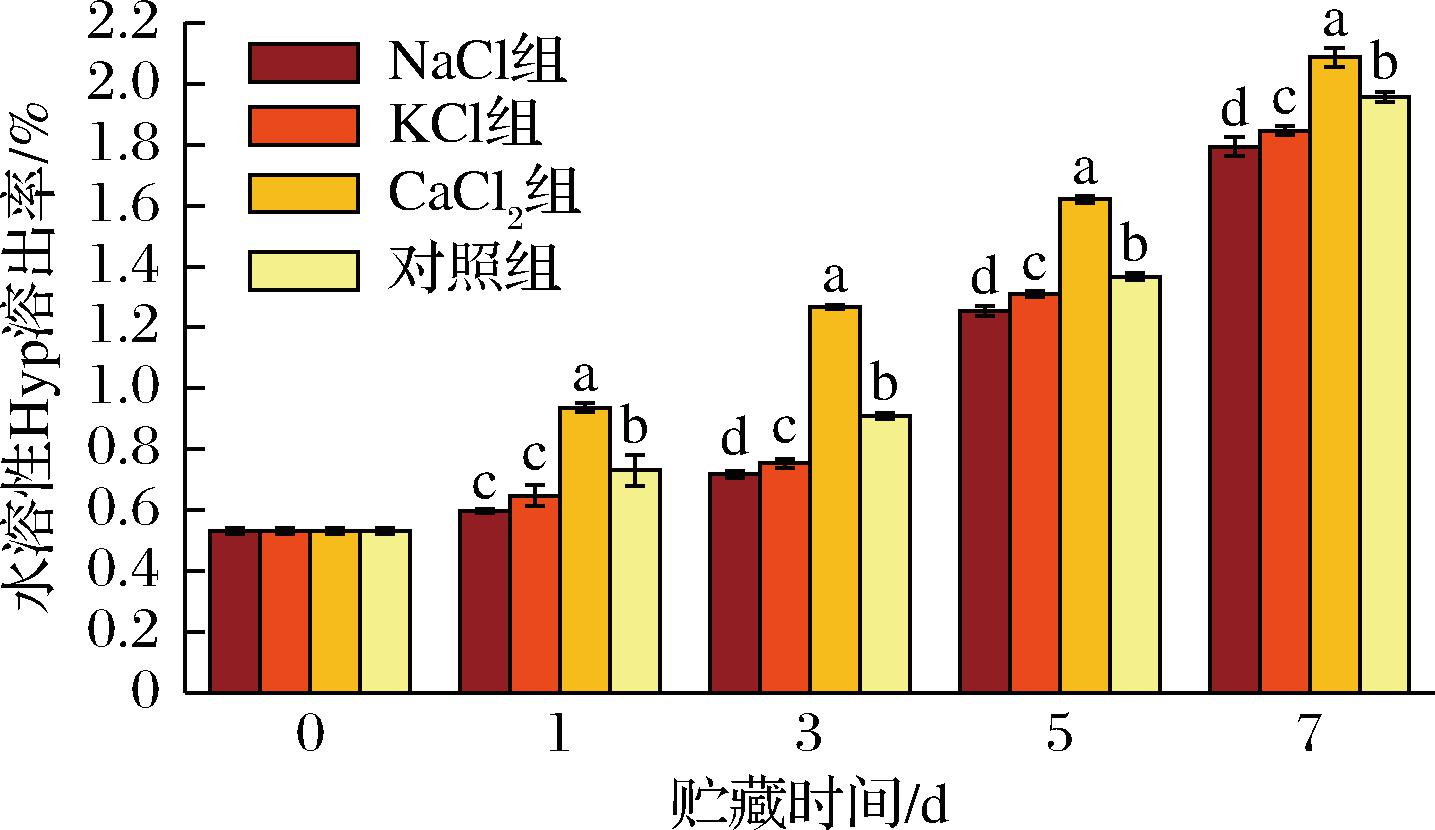
图4 冷藏(0~4 ℃)鲍鱼肌肉水溶性羟基脯氨酸变化
Fig.4 Water-soluble Hyp changes of abalone muscle at 0-4 ℃
2.3 盐种类对鲍鱼TBARS值的影响
TBARS值表征脂质氧化次级产物丙二醛的含量,用此值可判断含有脂肪的水产品是否发生酸败,以及酸败的程度。据邓雅心等[18]对黄颡鱼贮藏品质变化的研究,TBARS含量为1~2 mg/kg是酸败的不可接受阈值。如图5所示,新鲜鲍鱼的初始TBARS值为0.23 mg MDA/kg。随着冷藏时间的延长,4组鲍鱼的TBARS含量均逐渐增加,但未超过限值。其中,NaCl组的氧化程度最高,第7天时含量达到0.83 mg MDA/kg。相比之下,CaCl2组的氧化程度显著低于其他3组(0.58 mg MDA/kg,P<0.05)。这可能是Ca2+通过鲍鱼肌肉组织中的激活内源性抗氧化酶(如超氧化物歧化酶、谷胱甘肽过氧化物酶和过氧化氢酶)来中和自由基,从而抑制脂质氧化。
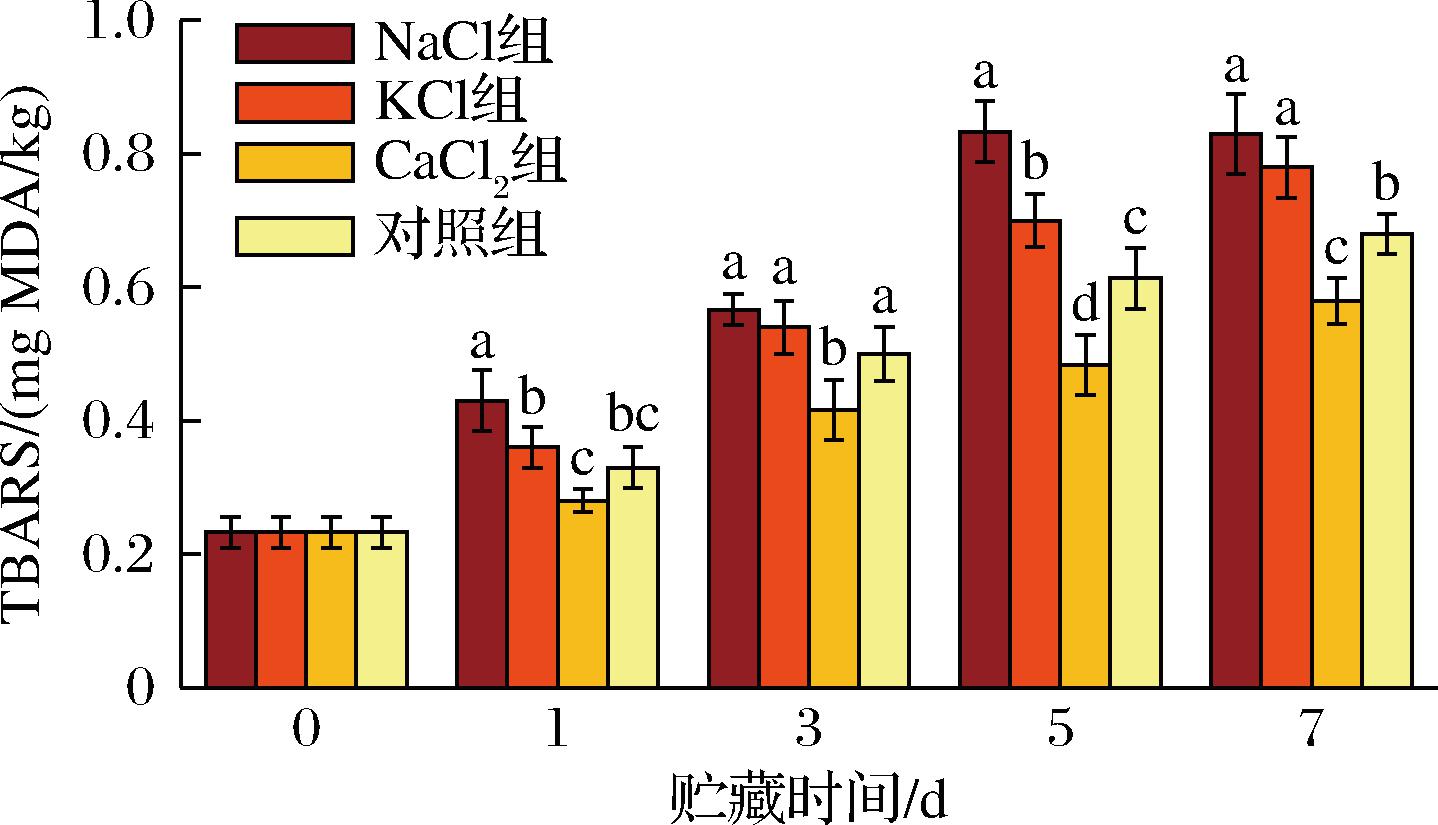
图5 冷藏(0~4 ℃)鲍鱼肌肉TBARS含量变化
Fig.5 TBARS changes of abalone muscle at 0-4 ℃
2.4 盐种类对鲍鱼微观结构影响
如图6所示,经H&E染色(肌原纤维呈红色,细胞核呈蓝紫色)后,新鲜鲍鱼的肌原纤维结构完整且排列整齐,组织内基本无间隙。随着冷藏时间延长,4组均出现不同程度的变形,其损伤差异与离子对蛋白酶活力的调控以及蛋白质降解的综合效应相关。冷藏第5天时,所有组鲍鱼肌原纤维逐渐变得不规则并出现间隙。其中,CaCl2组激活了蛋白酶,加剧了蛋白质降解反应,肌原纤维出现明显断裂。到第7天时,CaCl2组的肌原纤维结构变得更加紊乱,断裂程度最为显著。相比之下,NaCl组通过抑制酶活力显著减缓了蛋白质降解反应,因此其肌原纤维相对完整。
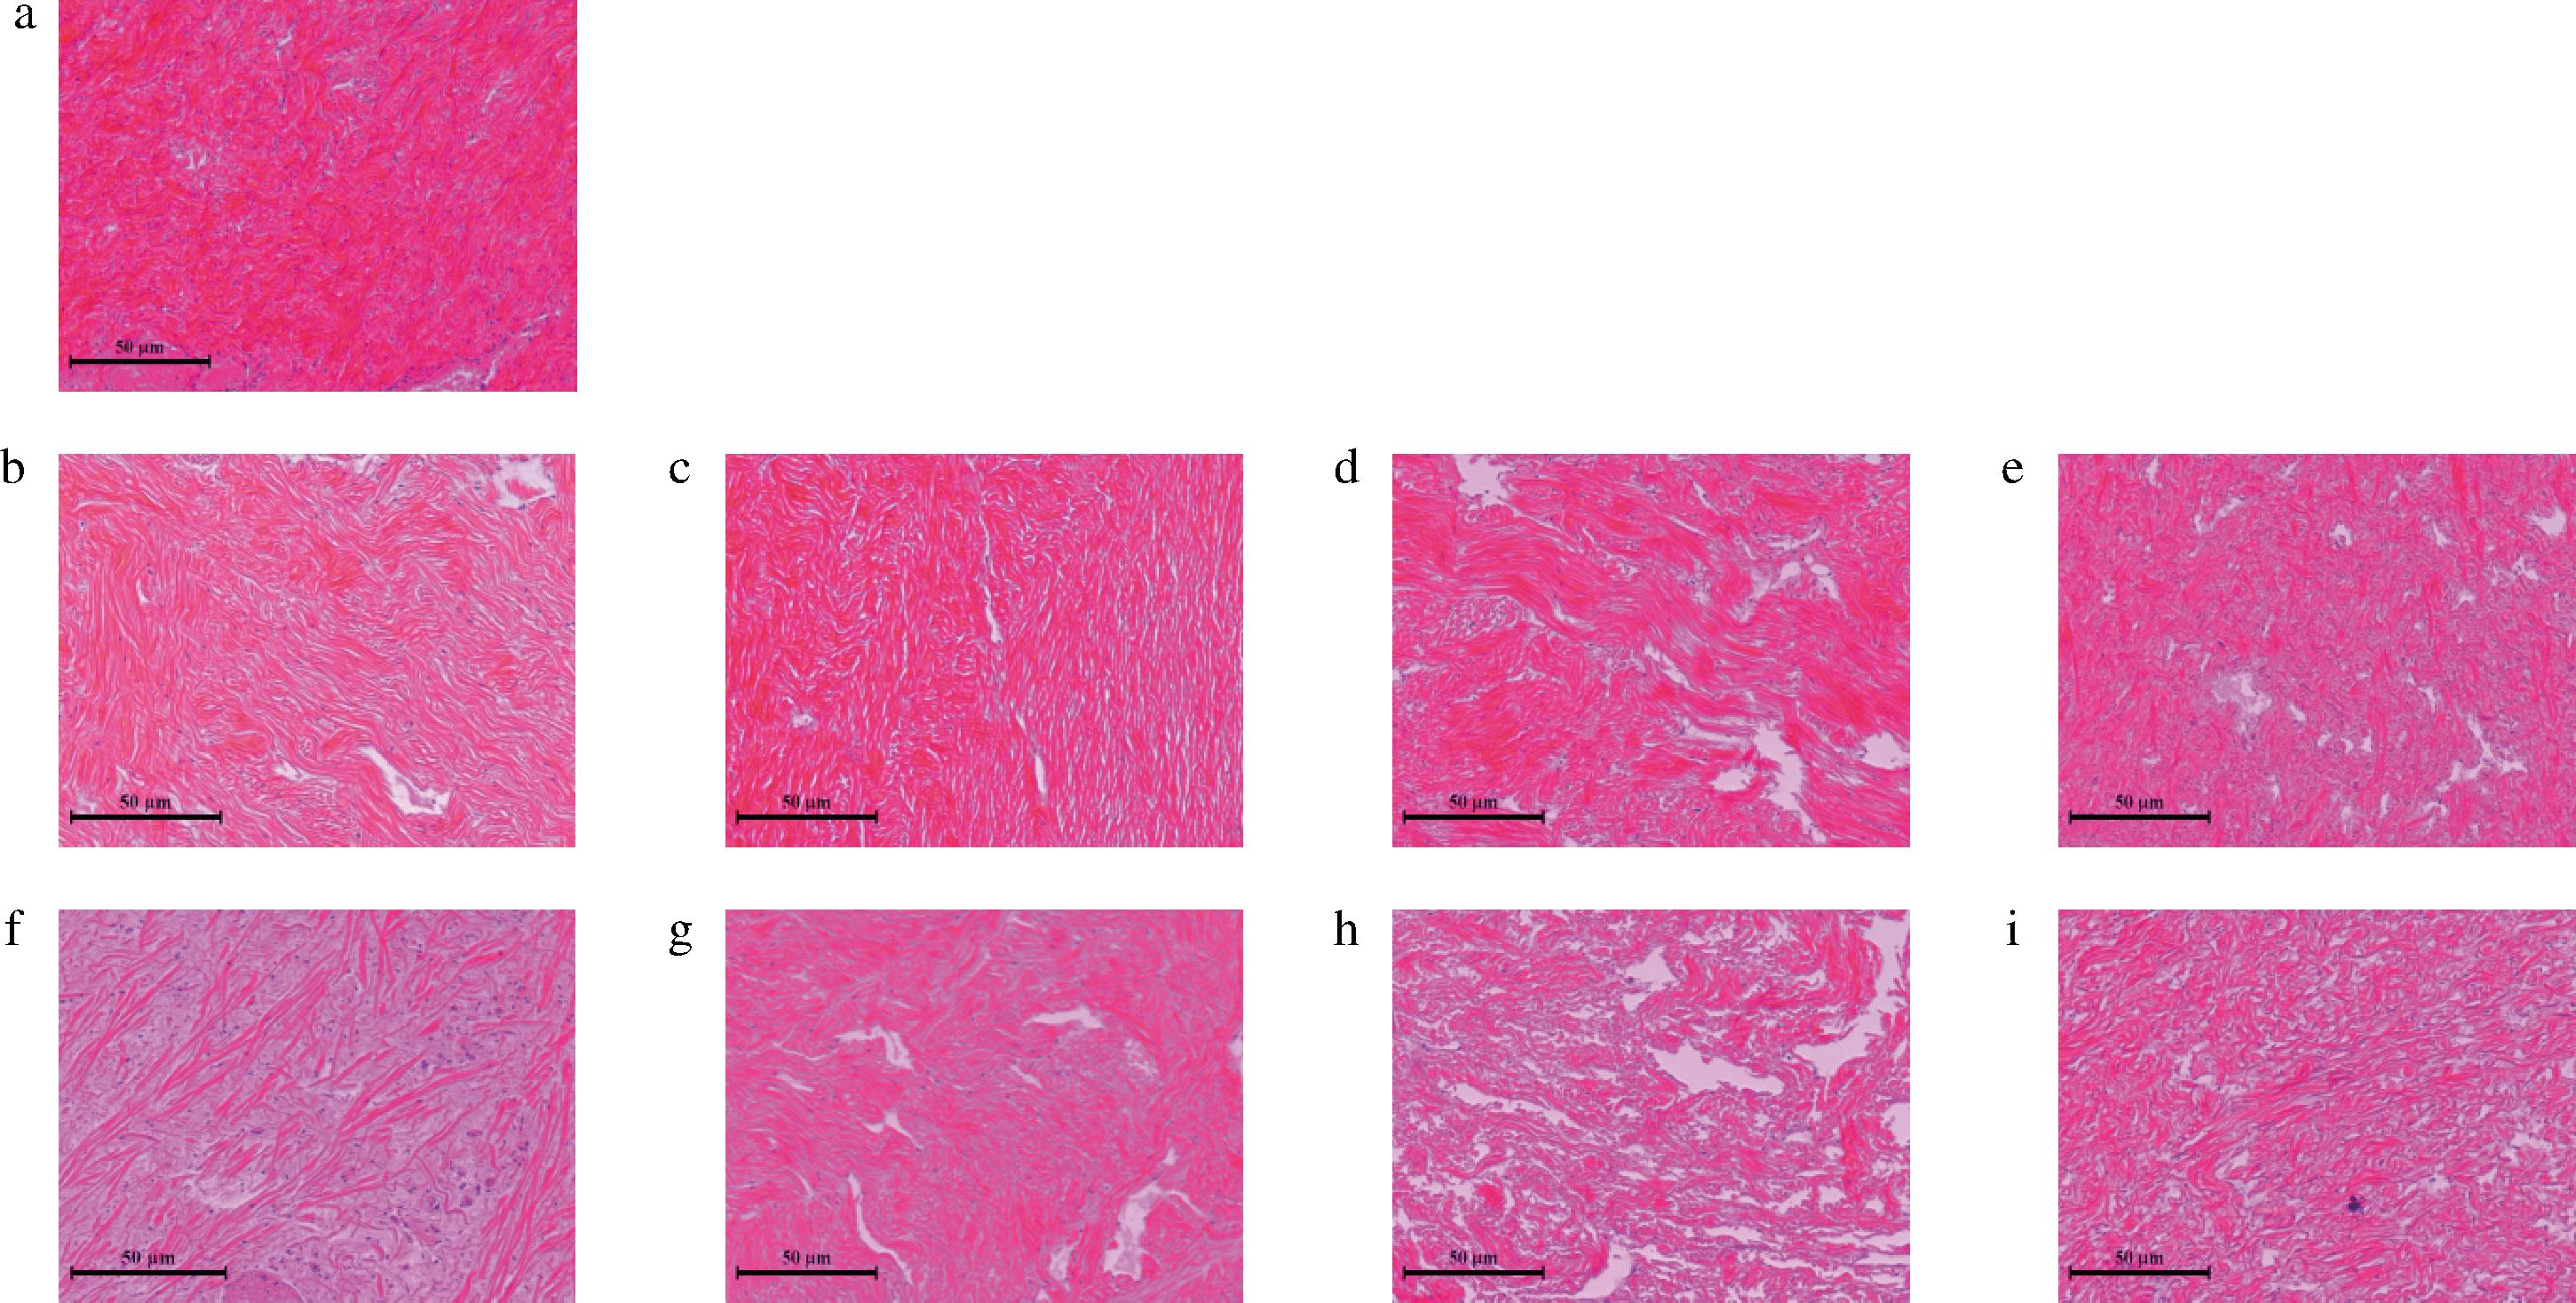
a-新鲜鲍鱼;b-NaCl组冷藏5 d;c-KCl组冷藏5 d;d-CaCl2组冷藏5 d;e-对照组冷藏5 d;f-NaCl组冷藏7 d;g-KCl组冷藏7 d;h-CaCl2组冷藏7 d;i-对照组冷藏7 d
图6 冷藏(0~4 ℃)鲍鱼肌肉组织纵切面图
Fig.6 Longitudinal section of abalone muscle tissue at 0-4 ℃
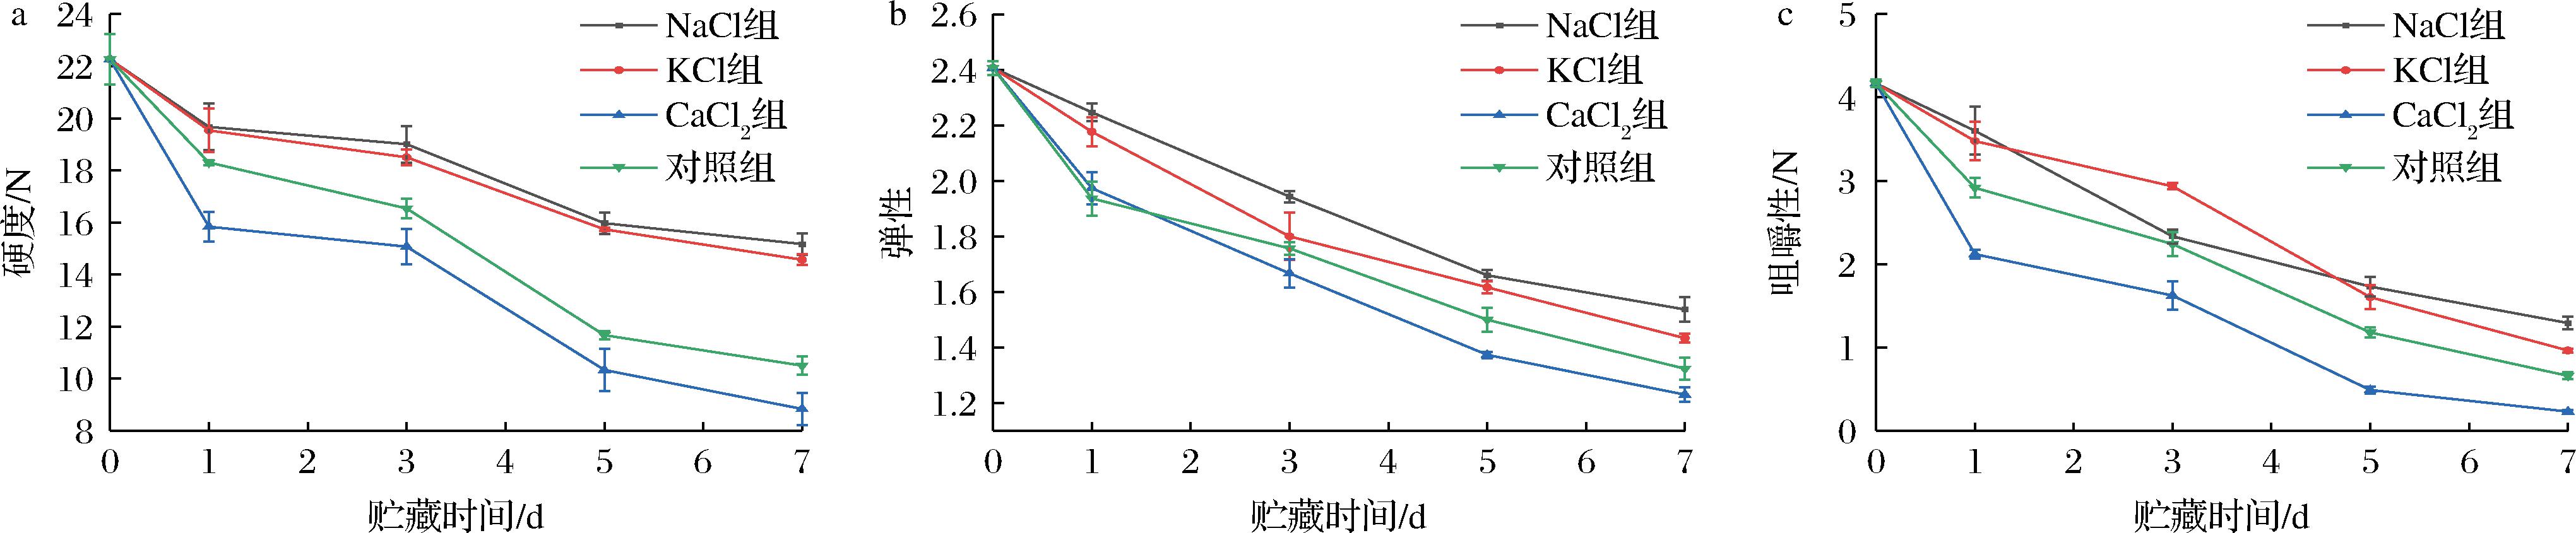
a-硬度;b-弹性;c-咀嚼性
图7 冷藏(0~4 ℃)鲍鱼肌肉的质构变化
Fig.7 Texture changes of abalone muscle at 0-4 ℃
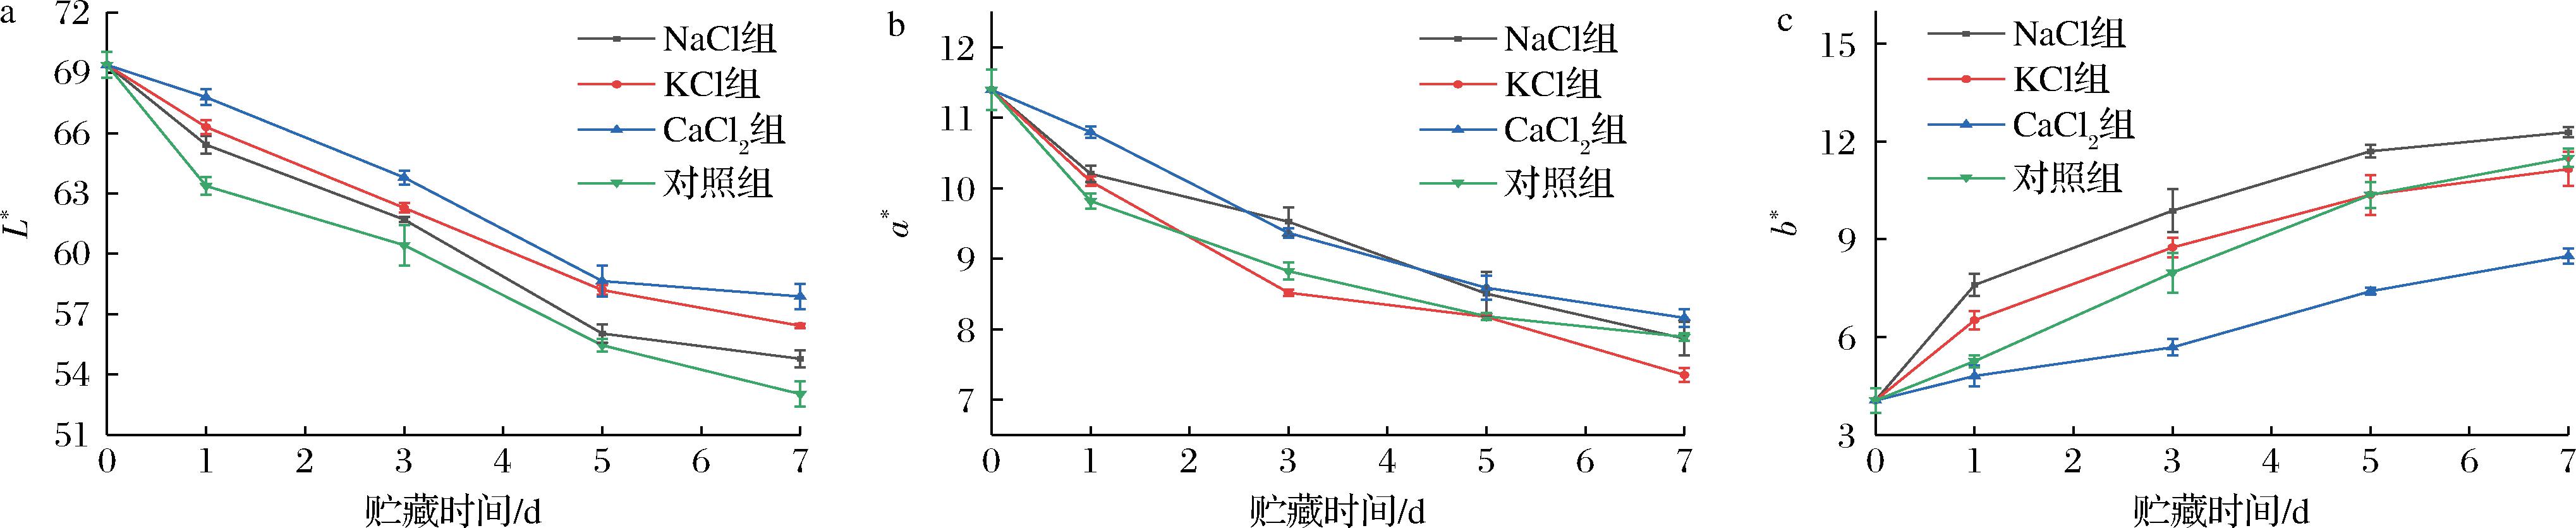
a-亮度值L*;b-红绿值a*;c-黄蓝值b*
图8 冷藏(0~4 ℃)鲍鱼肌肉的色差变化
Fig.8 Color changes of abalone muscle at 0-4 ℃
2.5 盐种类对鲍鱼质构的影响
水产品的质地是消费者判断其新鲜的重要指标[19]。如图7所示,在冷藏期间,4组鲍鱼肌肉的硬度、弹性和咀嚼性均呈现持续下降趋势。这一现象表明,鲍鱼肌肉中的内源性蛋白酶在冷藏过程中持续发挥作用,导致肌原纤维蛋白降解,从而破坏肌肉组织的结构完整性并导致质构劣变。冷藏7 d后,NaCl组的鲍鱼肌肉硬度、弹性和咀嚼性显著高于对照组(P<0.05)。推测NaCl通过调节肌肉组织的渗透压或直接抑制内源性蛋白酶活力,对延缓蛋白质降解具有积极作用,使质构品质获得有效保持。KCl同样具有保持质构品质能力,其质构参数综合较NaCl偏低6.65%。经过一级动力学模型拟合发现,NaCl与KCl处理分别可保持鲍鱼肌肉质构品质维持时间延长(3±1)d和(2±1)d,通过ANOVA检验后表明,二者对咀嚼性延缓时间的影响具有显著差异(P<0.05)。相比之下,CaCl2组由于Ca2+激活了内源性蛋白酶活力,加速了蛋白质降解反应进一步加剧了鲍鱼肌肉软化,这种特定的激活效应反而在嫩度方面取得了良好改善效果。这与Ostoja等[20]关于牛肉嫩度的研究结果一致。
2.6 盐种类对鲍鱼色差的影响
色泽是水产品的重要感官指标,与肌红蛋白的化学状态和氧化程度密切相关。其变化主要受脂质氧化作用影响[21]。如图8-a所示,鲍鱼肌肉的亮度值在冷藏过程中均呈现整体下降趋势。推测主要原因在于鲍鱼肌肉内源性酶的催化反应生成有色醌类物质,这些物质改变了肌肉的光学特性,降低组织透明度,最终导致亮度值下降。值得注意的是,3组盐处理组的鲍鱼肌肉亮度值均高于空白对照组。推测可能原因为盐类可与肌原纤维蛋白等肌肉蛋白结合,改变其空间构象,并促进蛋白质聚集形成更规则的组织结构。如图8-b所示,随着冷藏时间延长,所有组别鲍鱼肌肉的红绿值持续下降;结合图8-c可见,黄蓝值呈现上升趋势。这一系列变化表明鲍鱼肌肉颜色逐渐转变为黄绿色。这一现象很可能是由于鲍鱼死亡后微生物的作用导致肌红蛋白氧化变质,其氧化产物促进了肌肉颜色的逐渐变深。当冷藏7 d时,CaCl2组鲍鱼肌肉的黄蓝值显著低于空白对照组(P<0.05),这很可能是因为Ca2+抑制了脂质氧化,从而有效抑制了鲍鱼冷藏期间黄蓝值的增加。
3 结论
本研究探究了NaCl、KCl、CaCl2对冷藏(0~4 ℃)鲍鱼货架期内(7 d)总蛋白酶活力的调控作用对蛋白结构变化及质构、色泽、微观结构的影响。结果表明:通过比较对总蛋白酶活力的抑制效果、肌原纤维蛋白结构的变化以及减缓硬度、弹性劣变及对保持组织结构完整性方面,3种盐的作用强度存在明显差异,其强度顺序为NaCl>KCl>CaCl2;然而在减缓色泽劣变(如抑制b*值上升),3种盐的作用效果强度顺序则为CaCl2>KCl>NaCl。本研究为3种盐在鲍鱼加工与处置中的合理应用提供重要参考:NaCl适用于以质构保持为核心目标的需求;KCl适用于平衡质构特征和色泽保持,兼顾双向品质为核心目标的需求;CaCl2适用于保持色泽并提高嫩度为核心目标的需求。通过对比3种盐处理对冷藏鲍鱼货架期内酶活力的调控作用及对鲍鱼品质的影响发现:适当的盐处理有利于鲍鱼新鲜度品质的保持。更有益的是,KCl和CaCl2具有替换NaCl、避免NaCl过度依赖的加工属性,契合营养均衡的需求。综上,本研究为鲍鱼这一特征水产品的品质需求提供了必要的技术支持,同时为低钠替代盐在冷藏鲍鱼中的应用提供客观数据支撑,也为相关营养学研究中低盐水产品的配方筛选提供理论参考。
[1] 蔡佳琦, 秦小明, 卢虹玉, 等.鲍鱼肌肉酶解产物对秀丽隐杆线虫的抗衰老作用研究[J].食品与发酵工业, 2023, 49(12):106-112.Cai J Q, Qin X M, Lu H Y, et al.Anti-aging effect of abalone muscle enzymatic hydrolysate on Caenorhabditis elegans[J].Food and Fermentation Industries, 2023, 49(12):106-112.
[2] 张宁. 明胶基智能指示标签的制备及其对虾新鲜度的实时监测研究[D].长沙:中南林业科技大学, 2025.Zhang N.Preparation of gelatin-based smart indicator labels and real-time detection of shrimp freshness[D].Changsha:Central South University of Forestry and Technology, 2025.
[3] 黄诗钰, 施文正, 王锡昌, 等.NaCl对水产制品品质的影响及减盐调控技术研究进展[J].食品科学, 2023, 44(11):260-268.Huang S Y, Shi W Z, Wang X C, et al.Effect of NaCl on the quality of aquatic products and research progress on salt reduction technologies[J].Food Science, 2023, 44(11):260-268.
[4] 范铭良, 郝淑贤, 李来好, 等. 真空冷藏条件下罗非鱼内源蛋白酶对鱼片质构劣化的作用[J]. 南方农业学报, 2023, 54(2):555-563.Fan M L, Hao S X, Li L H, et al. Effect of endogenous protease of tilapia on texture deterioration of fillets under vacuum refrigeration[J]. Journal of Southern Agriculture, 2023, 54(2):555-563.
[5] 梅俊, 许振琨, 郁慧洁, 等.冷链物流中海水鱼的腐败机制及保鲜技术研究进展[J].食品与生物技术学报, 2022, 41(7):84-99.Mei J, Xu Z K, Yu H J, et al. Research progress on spoilage mechanism and preservation technology of marine fish in cold chain logistics[J]. Journal of Food Science and Biotechnology, 2022, 41(7):84-99.
[6] 王薇, 刘楷升, 刘俊松, 等.食盐腌渍对冷藏脱血许氏平鲉鱼片蛋白和呈味特性的影响[J].渔业研究, 2024, 46(6):605-614.Wang W, Liu K S, Liu J S, et al. Effect of salt marination on protein and flavor characteristics of fish fillets of Sebastes schlegelii during cold storage[J]. Journal of Fisheries Research, 2024, 46(6):605-614.
[7] Zhang K X, Li N, Wang Z H, et al.Recent advances in the color of aquatic products:Evaluation methods, discoloration mechanism, and protection technologies[J].Food Chemistry, 2024, 434:137495.
[8] 雷莹莹, 郑锶颖, 汪文新, 等.1990—2021年全球及中国高血压心脏病流行趋势及预测研究[J].中国全科医学, 2026, 29(5):641-648;655.Lei Y Y, Zhang S Y, Wang W X, et al.Prevalence trend and prediction of hypertensive heart disease in the world and China from 1990 to 2021[J].Chinese General Practice, 2026, 29(5):641-648;655.
[9] Yu N N, Xu Y S, Jiang Q X, et al.Textural and physicochemical properties of surimi gels prepared with potassium and calcium chloride as substitutes for sodium chloride[J].International Journal of Food Properties, 2017, 20(sup 2):1539-1552.
[10] 王杰. 低盐三文鱼方便食品加工过程中磷脂组学与品质变化研究[D].杭州:浙江工商大学, 2021.Wang J.Study on the changes of phospholipidomics and quality of low-salt salmon convenience food[D].Hangzhou:Zhejiang Gongshang University, 2021.
[11] Ye ilsu A F, Alp-Erbay E, Da
 tekin B B, et al.Effect of partial replacement of NaCl with KCl on quality of marinated anchovies[J].Journal of Aquatic Food Product Technology, 2021, 30(6):733-745.
[12] Zhang T, Xue Y, Li Z J, et al.Effects of ozone on the removal of geosmin and the physicochemical properties of fish meat from bighead carp (Hypophthalmichthys nobilis)[J].Innovative Food Science &Emerging Technologies, 2016, 34:16-23.
[13] Wang D Y, Zhang M H, Deng S Y, et al.Postmortem changes in actomyosin dissociation, myofibril fragmentation and endogenous enzyme activities of grass carp (Ctenopharyngodon idellus) muscle[J].Food Chemistry, 2016, 197:340-344.
[14] 陈诗妍, 吉宏武, 李承勇, 等.凡纳滨对虾内源蛋白酶对肌原纤维蛋白的降解作用[J].食品工业科技, 2015, 36(5):149-155.Chen S Y, Ji H W, Li C Y, et al.Degradation of myofibrillar protein by endogenous proteases from Litopenaeus vannamei[J].Science and Technology of Food Industry, 2015, 36(5):149-155.
[15] Armenteros M, Aristoy M C, Toldr F.Effect of sodium, potassium, calcium and magnesium chloride salts on porcine muscle proteases[J].European Food Research and Technology, 2009, 229(1):93-98.
[16] Xu Y X, Li T, Zhang C M, et al.Protein degradation of olive flounder (Paralichthys olivaceus) muscle after postmortem superchilled and refrigerated storage[J].International Journal of Food Properties, 2018, 21(1):1911-1922.
[17] Liu B, Liu Z Q, Li D Y, et al.Action of endogenous proteases on texture deterioration of the bay scallop (Argopecten irradians) adductor muscle during cold storage and its mechanism[J].Food Chemistry, 2020, 323:126790.
[18] 邓雅心, 胡广地, 孙翰昌, 等.山苍子精油/壳聚糖涂膜保鲜对黄颡鱼贮藏品质的影响[J].食品科技, 2024, 49(3):125-132.Deng Y X, Hu G D, Sun H C, et al.Effects of Litsea cubeba essential oil/chitosan coating on storage quality of Pelteobagrus fulvidraco[J].Food Science and Technology, 2024, 49(3):125-132.
[19] Yue P P, Chen P, Wu Z H, et al.Dietary hydroxyproline supplementation improves the muscle texture and extends the shelf life of abalone Haliotis discus Hannai[J].Aquaculture, 2024, 590:741082.
[20] Ostoja H, Cierach M.Effect of calcium ions on the solubility of muscular collagen and tenderness of beef meat[J].Die Nahrung, 2003, 47(6):388-390.
[21] Germolus C B, Rehman U N, Ramahi A A, et al.Lipid oxidation product nonenal and myoglobin oxidation[J].International Journal of Food Science &Technology, 2022, 57(10):6602-6612.