益生元是一类可被肠道有益微生物利用并促进宿主健康的物质。低聚半乳糖(galacto-oligosaccharides,GOS)作为能高效促进双歧杆菌增殖且调节多种生理功能的“黄金标准”益生元,已成为功能性食品与精准营养领域的关键成分[1]。β-半乳糖苷酶(β-galactosidase,β-Gal),又称乳糖酶,已广泛应用于乳制品加工,通过降解乳糖可获得低乳糖牛奶,进而改善乳糖不耐受现象[2]。在特定条件下,该酶可催化转糖苷反应,将半乳糖残基转移至另一乳糖分子形成新糖苷键,从而合成GOS。由于GOS的结构与人乳寡糖高度相似,其常作为新生儿及婴儿配方奶粉的重要添加成分[3]。因此,开发高效安全的β-Gal并利用其转糖基化活性生产GOS,已成为当前研究的热点。
不同来源的β-Gal转糖苷活性差异显著,工业生产GOS仍面临酶使用成本高、GOS得率低的技术难题。目前,研究者们主要聚焦于新酶挖掘、分子改造及GOS制备工艺优化等方向。例如,阿勇蛞蝓(Arion sp.)[4]和乳酸克鲁维酵母(Kluyveromyces lactis)[5]来源的β-Gal已在大肠杆菌中实现表达;乙酸极小杆菌(Exiguobacterium acetylicum)来源的β-Gal在毕赤酵母中成功表达[6];许俊勇等[7]将环状芽孢杆菌(Bacillus circulans)来源的β-Gal在枯草芽孢中经小罐发酵实现138.3 U/mL的酶活力,显著提升了发酵产酶水平;Yan等[8]则在毕赤酵母中表达B.circulans的β-Gal并优化其合成GOS的反应条件。此外,部分研究通过蛋白质工程改造、酶固定化或酶膜反应器等技术,提升β-Gal的转苷活性及GOS的合成效率[9-12]。
用于乳制品酶解的β-Gal通常来源于酵母、真菌及细菌,如米曲霉(Aspergillus oryzae)[9]、乳酸杆菌(Lactobacillus sp.)、K.lactis[5]和B.circulans[13]等。其中,环状芽孢杆菌来源的β-Gal因其高转苷活性成为研究热点,异源高效表达是其核心研究方向之一。β-Gal为结构复杂的多亚基蛋白,在环状芽孢杆菌中可以借助自身分泌系统完成正确折叠后分泌至细胞外,从而获得功能完整、性质优良且能高效生产的天然酶。目前,发酵生产β-Gal的环状芽孢杆菌多为天然或经诱变获得,存在发酵周期较长、产酶水平低的问题,且β-Gal的大部分酶活力存在于细胞内,需通过细胞破碎技术裂解释放,导致酶后处理工艺复杂、酶产品质量稳定性差等技术难题。
本研究首次将环状芽孢杆菌来源的β-Gal基因在自身细胞中实现同源高效分泌表达,对该β-Gal进行了酶学性质表征,评价了其制备GOS的应用潜力,并开展小罐发酵试验,为其工业化生产奠定基础。
1 材料与方法
1.1 质粒,菌株和试剂
1.1.1 菌株、质粒及培养基
本研究所用菌株与质粒如表1所示。
表1 本研究中使用的菌株和质粒
Table 1 Strains and plasmids used in this research
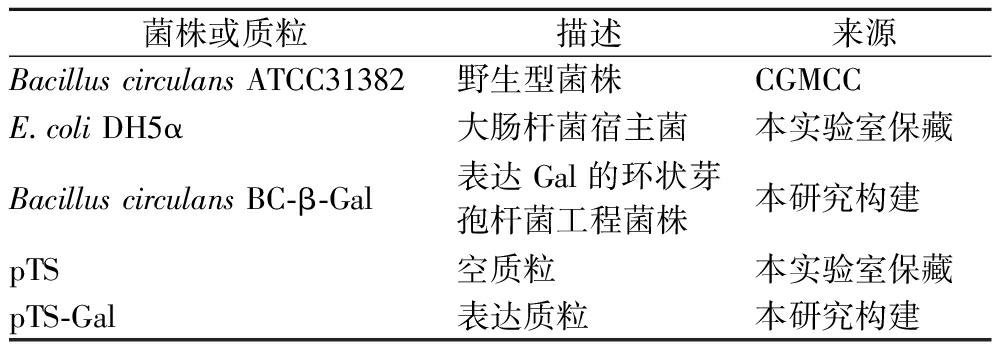
菌株或质粒 描述来源Bacillus circulans ATCC31382野生型菌株 CGMCCE.coli DH5α大肠杆菌宿主菌本实验室保藏 Bacillus circulans BC-β-Gal表达Gal的环状芽孢杆菌工程菌株本研究构建pTS空质粒本实验室保藏 pTS-Gal表达质粒本研究构建
平板培养基为LB(Luria-Bertani)培养基;环状芽孢杆菌摇瓶发酵培养基(g/L):大豆蛋白胨 10,酵母粉 5,乳糖10,Na2HPO4 3,Na2CO3 2,MgSO4 3,pH 6.5;罐发酵基础培养基(g/L):酵母粉 7.5,玉米浆粉 5,葡萄糖 10,MgSO4 1.0,(NH4)2SO4 3,NaH2PO4 4.0,K2HPO4 14.6;补料培养基为质量分数30%的葡萄糖溶液。
1.1.2 主要试剂与设备
限制性内切酶、PrimerStar DNA聚合酶等工具酶,日本TaKaRa公司;质粒小量提取试剂盒、琼脂糖凝胶纯化回收试剂盒、PCR产物回收试剂盒,美国Omega公司;细菌基因组提取试剂盒,天根公司;U-Clone试剂盒,ABclonal公司;氨苄青霉素、DMSO、卡那霉素、氯霉素,上海生物工程有限公司;其他试剂无特殊说明均为分析纯。
Gel Doc XR+全自动凝胶成像系统,美国Bio-Rad公司;TP600型PCR仪, 日本TaKaRa公司;FUS 30-L全自动发酵罐,上海国强有限公司;5435小型台式离心机,德国Eppendorf公司;ZQZY-78BE摇床,上海知楚仪器有限公司;DH43L电热恒温培养箱,天津泰斯特仪器有限公司; DYY-6C核酸胶电泳仪,北京六一电泳仪器厂;Waters Alliance e2695高效液相色谱仪,美国Waters公司;Silica gel 60薄层层析板,德国Merck公司。
1.2 实验方法
1.2.1 基因组DNA的提取
Bacillus circulans ATCC 31382来源于中国典型培养物保藏中心(CGMCC),采用北京天根公司细菌基因组试剂盒提取基因组DNA,操作方法参照试剂盒说明书。
1.2.2 β-Gal基因的表达质粒构建
根据β-Gal基因(GenBank登录号:AB605256.1)设计引物Gal-F/Gal-R,用于扩增目的基因。通过PCR扩增β-Gal序列片段,纯化回收目的片段;采用SalⅠ对质粒pTS进行酶切并回收;利用ABclonal公司的U-Clone kit进行连接反应,将连接产物转化至E.coli DH5α感受态细胞;采用引物Quyz-F/Quyz-R对转化子进行菌落PCR检测,阳性转化子送上海生工生物股份有限公司进行测序验证。
引物序列如下:
Gal-F:TAAAGAGGAGGAGAGTGAGTAGTCGACATGTCAAAAACGACATCG
Gal-R:CTTTTTACTAACGCGTATGGATCCTTATGGCGTTACCGTAAATACGC
Quyz-F:CGTCCATGTGAAGCATATATCTC
Quyz-R:GAGCGGATAACAATTTCACACAGG
1.2.3 环状芽孢杆菌的转化
参照Sabir等[14]的方法并稍作修改,采用化学转化法将重组质粒pTS-Gal转入环状芽孢杆菌感受态细胞,涂布于含5 mg/L氯霉素的LB平板,在37 ℃培养箱中培养16~20 h后,挑取转化子进行菌落PCR验证。将验证成功的转化子接种至含5 μg/mL氯霉素的LB平板划线纯化,随后进行摇瓶发酵验证其表达情况。
1.2.4 重组菌的摇瓶发酵和罐发酵
将阳性转化子划线至含5 μg/mL氯霉素抗性的LB平板,过夜培养。挑取单菌落接种于含5 μg/mL氯霉素的种子培养基,37 ℃、200 r/min培养24 h,按10%(体积分数)接种量转接至发酵培养基中(100 mL三角瓶中装液量30 mL),37 ℃、200 r/min培养48 h。摇瓶发酵结束后,测定发酵上清液酶活力,并进行SDS-PAGE分析。
15 L罐的初始装液量为8 L,接种量为5%(体积分数);待底糖耗尽、pH上升且溶氧反弹后开始补料,发酵过程中溶氧控制在30%左右,残糖含量控制在0.5 g/L;每隔一定时间取样,测定菌体OD600值及酶活力。
1.2.5 邻硝基苯-β-D 吡喃半乳糖苷水解酶活力测定
酶活力定义:在37 ℃、pH 4.5条件下,每分钟从质量浓度为2.96 mg/mL的邻硝基苯-β-D吡喃半乳糖苷溶液中降解释放1 μmol邻硝基苯酚所需要的酶量,定义为1个酶活力单位(IU)。
酶活力测定方法参照Nagy等[15]并稍作修改:准确称取0.370 g邻硝基苯-β-D吡喃半乳糖苷,用100 mmol/L、pH 4.5的乙酸缓冲液定容至100 mL;试管中加入2 mL底物溶液,37 ℃预热5 min,加入0.5 mL一定稀释倍数的酶液,37 ℃准确反应15 min后,加入2.5 mL 110 g/L Na2CO3溶液终止反应并显色,在420 nm波长处测定溶液吸光值。
1.2.6 最适温度、pH及温度pH稳定性
为确定重组β-Gal的最适pH,在50 ℃条件下,检测不同pH(3.0~10.0)环境中的酶活力,以最高酶活力为100%,计算各个pH对应的相对酶活力。确定最适pH后,在该pH条件下,检测不同温度(20~80 ℃)下的酶活力,同样以最高酶活力为100%,计算各温度下的相对酶活力。
为检测重组β-Gal的pH稳定性,将酶液置于不同pH梯度(3.0~10.0)的缓冲液中,4 ℃静置保存(以最大限度抑制温度因素对酶活力的影响),2 h后取样测定残余酶活力,以初始酶活力为100%,计算不同pH条件下的相对酶活力。为检测其温度稳定性,将酶液置于提前预热至不同温度梯度(20~80 ℃)的水浴锅中保温30 min,随后测量残余酶活力,以初始酶活力为100%,计算不同温度下的相对酶活力。
1.2.7 GOS的制备及检测
GOS制备:以pH 5.0的磷酸缓冲液为溶剂,配制质量浓度为500 g/L的乳糖溶液作为反应底物;量取10 mL底物溶液置于50 mL离心管中,50 ℃水浴摇床预温育10 min,添加不同量的酶液启动反应;每隔2 h取样,通过加热5 min终止反应。
薄层色谱分析参照Yan等[8]并稍作修改:采用硅胶60薄层板,分别制备1 g/L的葡萄糖、乳糖、半乳糖标准液,实验样品稀释100倍,各样品点样量均为2 μL;展开溶剂体系为正丁醇∶异丙醇∶水(3∶12∶4,体积比),展开时间1 h,展开后将薄层板置于室温干燥,用体积分数30%的硫酸乙醇溶液显色10 s,于100 ℃条件下干燥10 min完成显色。
GOS含量的HPLC分析方法检测参照GB 1903.27—2022《食品安全国家标准 食品营养强化剂 低聚半乳糖》:样品经12 000 r/min离心处理10 min后,收集上清液并经0.2 μm滤膜过滤净化;将净化后的滤液进行梯度稀释,采用HPLC仪对各组分进行分离检测;其中,GOS中二糖的检测采用色谱柱Thermo Aps-2 HYPERSIL(4.6 mm×250 mm),GOS中的三糖、四糖、五糖及乳糖、单糖的检测采用色谱柱Hi-Plex Ca(300 mm×7.7 mm)。
2 结果与分析
2.1 重组菌株BC-β-Gal的构建
pTS质粒为实验室构建质粒,其启动子和终止子分别为地衣芽孢杆菌来源的碱性蛋白酶启动子PaprE和终止子TaprE。以Bacillus circulans ATCC 31382的基因组为模板,采用引物Gal-F/Gal-R扩增环状芽孢杆菌的β-Gal基因序列,通过U-clone方法将目的片段克隆至质粒pTS,转化大肠杆菌DH5α,获得表达质粒pTS-Gal(图1)。
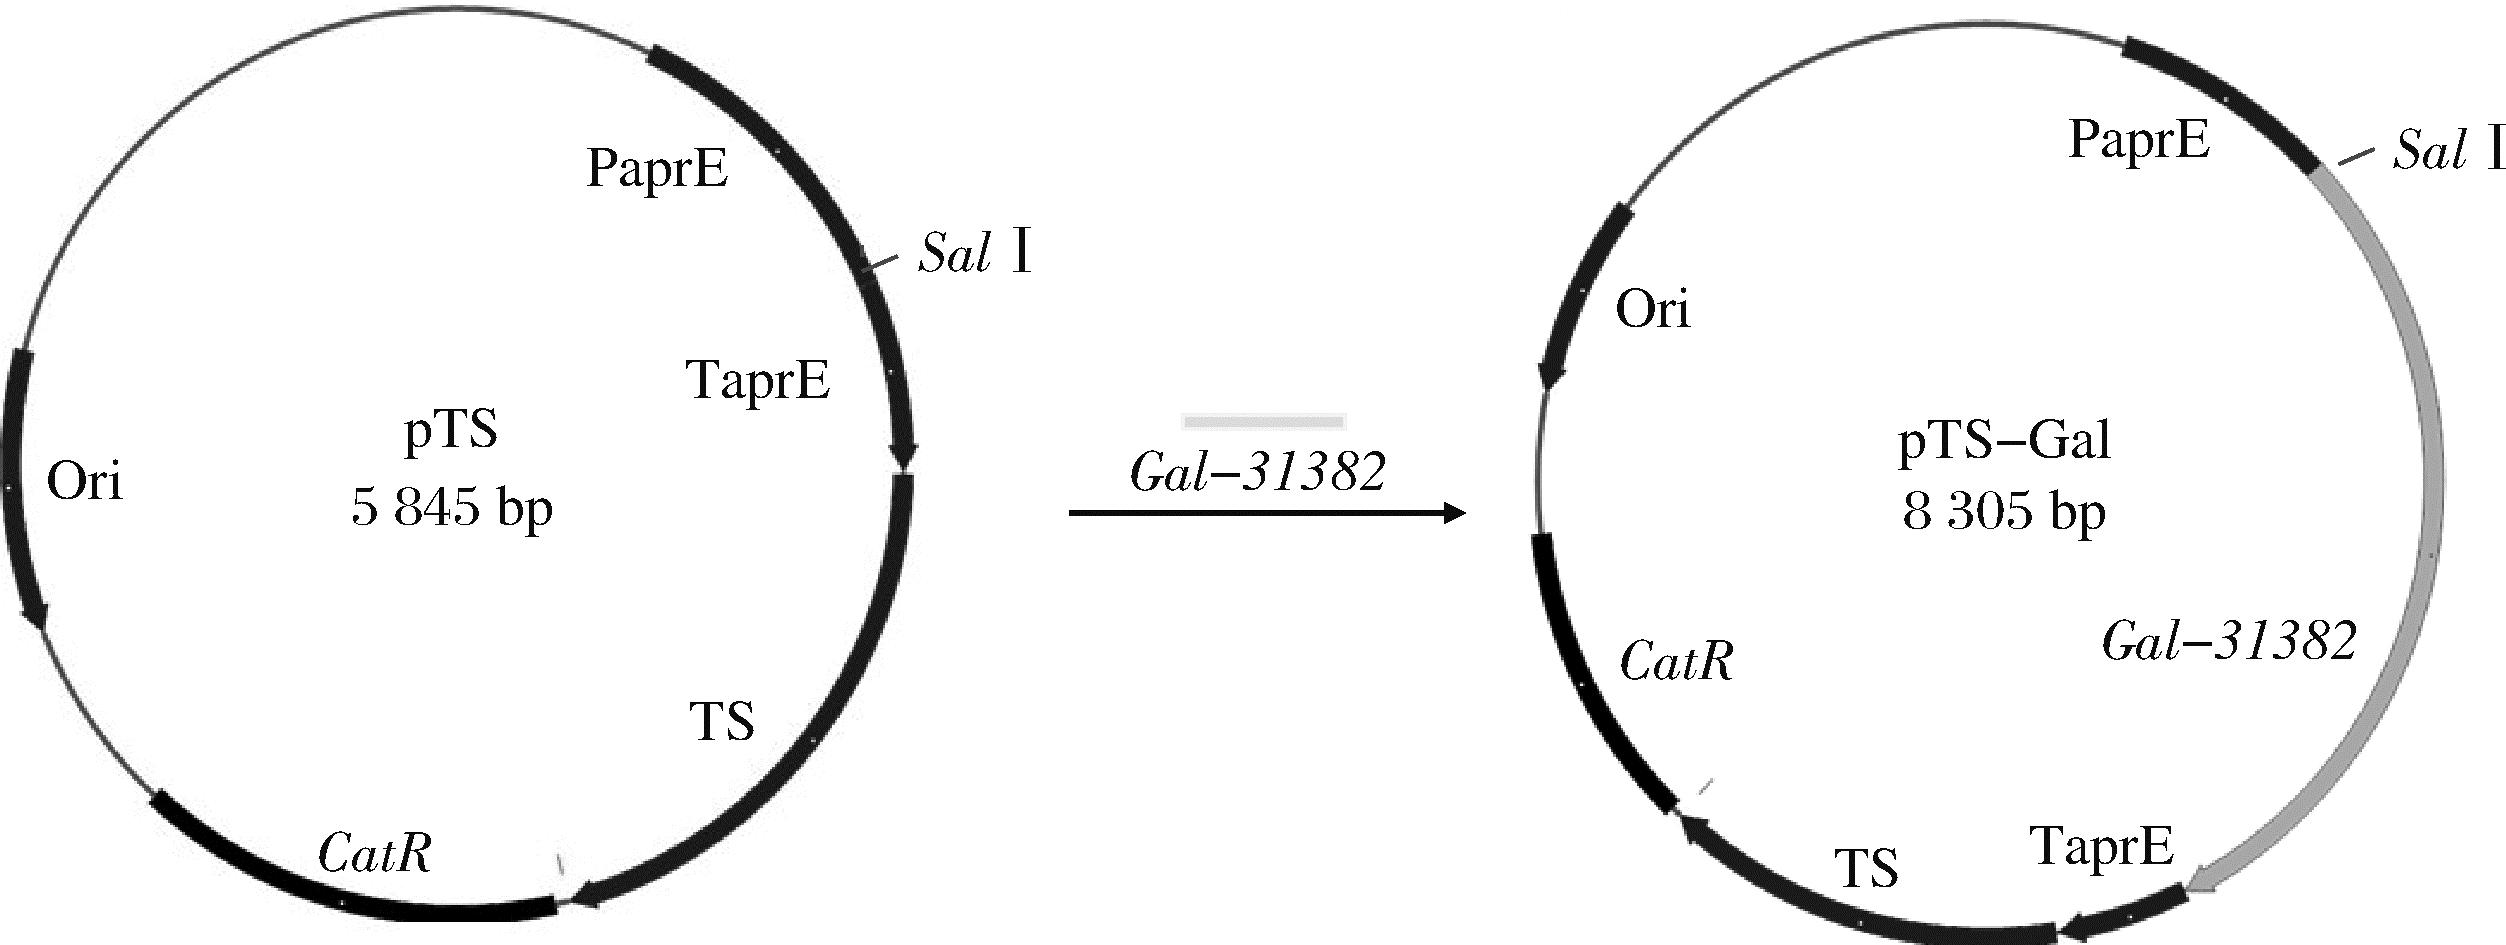
图1 重组质粒pTS-Gal的构建示意图
Fig.1 Schematic diagram of the recombinant plasmid pTS-Gal
注:pTS为空载质粒,含氯霉素抗性基因(CatR)、复制原点(Ori)及地衣芽孢杆菌来源的碱性蛋白酶启动子(PaprE)和终止子(TaprE);目的基因 为环状芽孢杆菌β-Gal基因(Gal-31382,GenBank登录号:AB605256.1),通过SalⅠ酶切位点克隆至pTS载体,重组后质粒全长8 305 bp。
环状芽孢杆菌为未经改造的自然菌株,外源基因导入难度较大,是分子操作的关键难点。本实验分别尝试化学转化、电转化、原生质体转化这3种方法,结果表明化学转化法可以成功将外源基因转入环状芽孢杆菌。由于环状芽孢杆菌生长速度较慢,确定在菌体浓度OD600=1.0时加入外源质粒为化学转化的关键条件。将重组载体pTS-Gal通过化学转化法导入到环状芽孢杆菌ATCC 31382,对获得的转化子采用质粒上的特异引物Quyz-F/Quyz-R进行菌落PCR验证,结果均能扩增出约1 800 bp的特异性条带(图2),经测序验证无误后,将该重组菌株命名为环状芽孢杆菌BC-β-Gal。
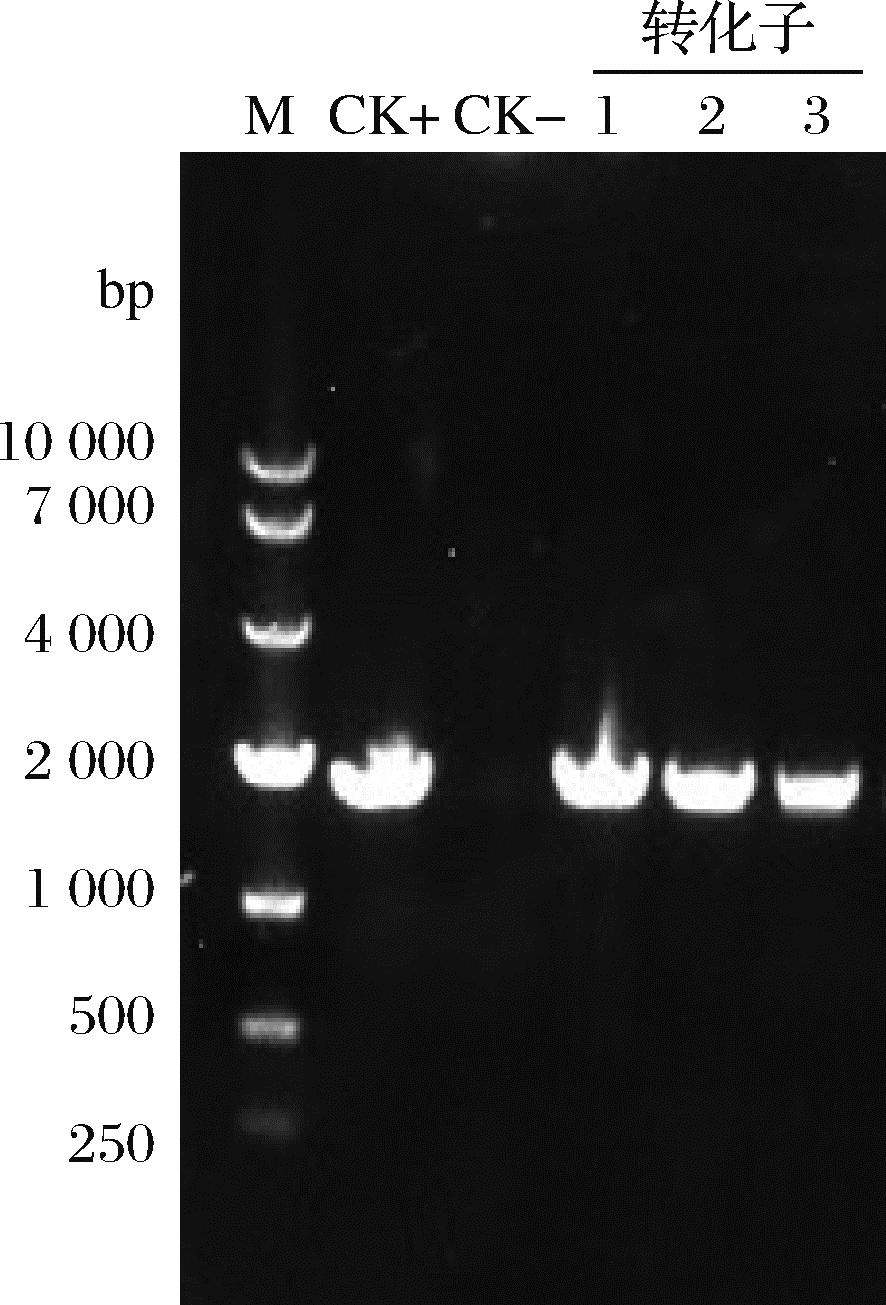
图2 重组菌株菌落PCR验证的琼脂糖凝胶电泳图
Fig.2 Agarose gel electrophoresis analysis of colony PCR products for recombinant strains
注:泳道M:DNA Marker(250 bp~10 kb);泳道CK+:阳性对照(pTS-Gal质粒为模板);泳道CK-:阴性对照(pTS空载质粒为模 板);泳道1~3:转化子菌落PCR产物。
2.2 β-Gal的高效表达
对重组菌株BC-β-Gal进行摇瓶发酵:首先采用LB培养基制备种子液,过夜培养后转接至发酵培养基,37 ℃摇瓶发酵48 h,对发酵液上清液进行SDS-PAGE分析。结果显示,目的蛋白获得明显表达(图3-a);酶活力分析表明,发酵上清液酶活力为9.86 U/mL。为进一步提高β-Gal表达水平,对重组菌株BC-β-Gal进行15 L小罐发酵,发酵过程中控制溶氧在30%以上。结果显示,β-Gal的表达水平显著提升,最高酶活力达到143 U/mL(图3-b和图4)。
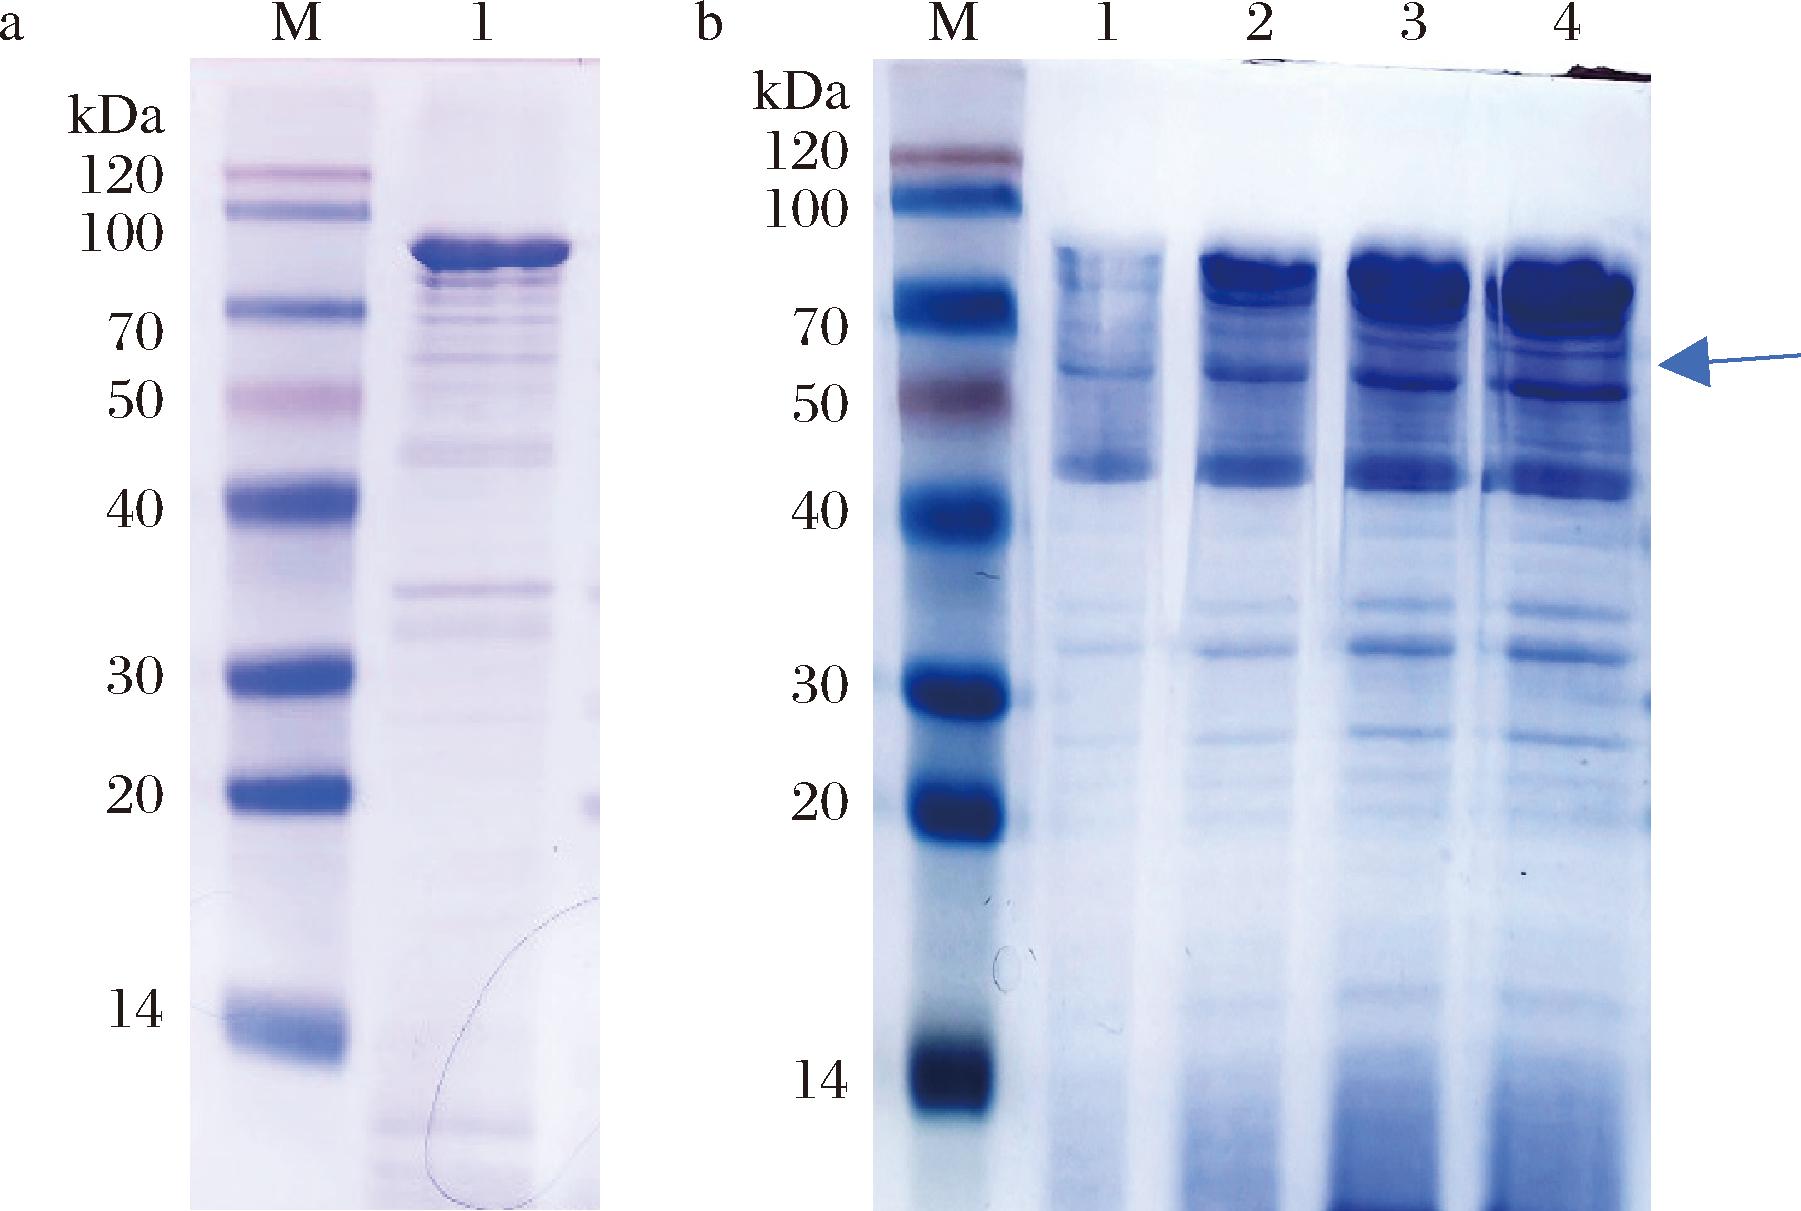
a-摇瓶发酵上清液;b-15 L 罐发酵上清液(稀释2倍)
图3 重组β-Gal的SDS-PAGE分析图
Fig.3 SDS-PAGE analysis of recombinant β-galactosidase
注:a图:泳道M-蛋白质Marker(14~120 kDa);泳道1-重组菌株BC-β-Gal发酵上清液。b图:泳道M-蛋白质Marker;泳道1~4-发酵12、24、48、72 h的上清液,箭头指示目的蛋白β-Gal(约92 kDa)。
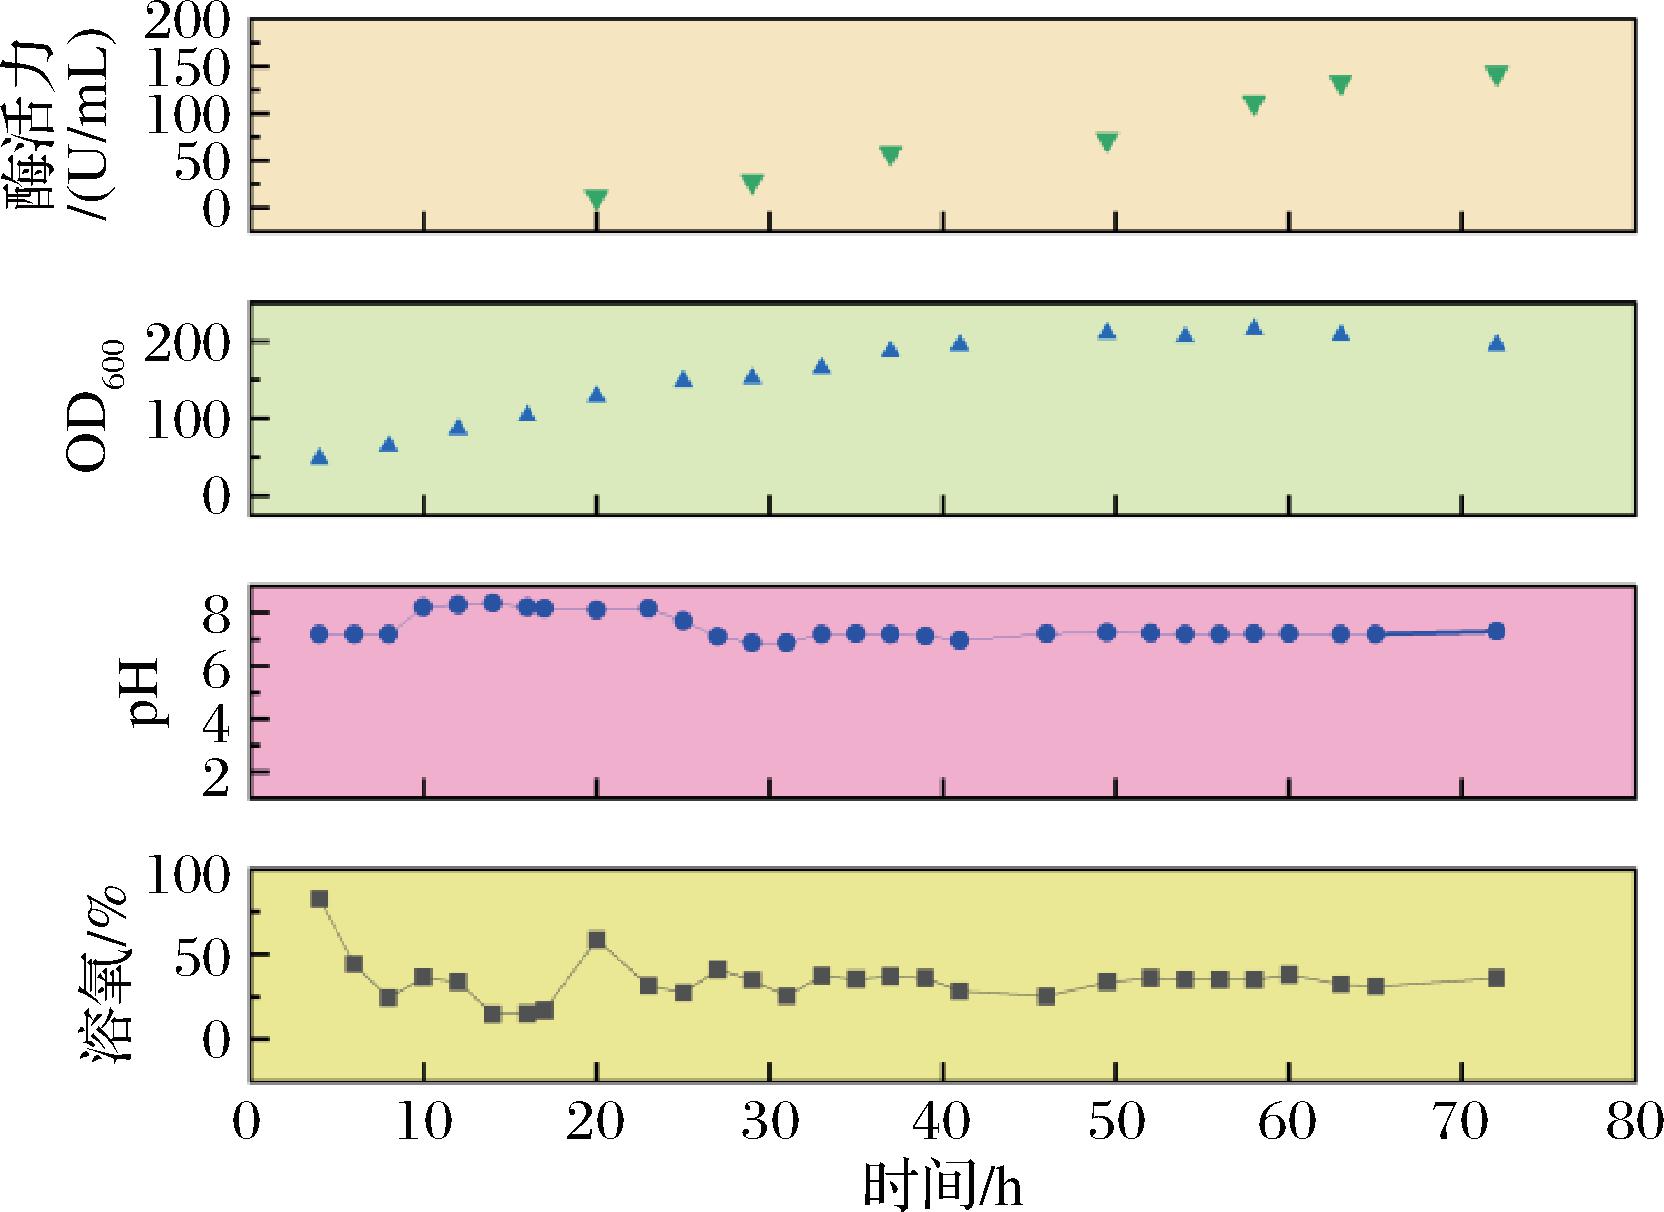
图4 重组菌株 BC-β-Gal 15 L 罐发酵关键参数动态变化
Fig.4 Dynamic changes of key parameters during 15 L fermenter cultivation of BC-β-Gal
注:发酵条件:37 ℃,通气搅拌控制溶氧≥30%,底糖耗尽后流加30%葡萄糖溶液,维持残糖≤0.5 g/L。
2.3 酶学性质分析
在不同温度、pH值条件下测定β-Gal发酵液的酶活力,以确定其最适温度和pH。结果显示,β-Gal的酶活力随温度升高呈先升后降趋势,最适作用温度为50 ℃;当温度升高至80 ℃时,酶活力几乎完全丧失(图5-a),推测其原因可能是高温破坏了蛋白质的空间结构,导致蛋白失活。在低温条件下(20~30 ℃),该酶仍保持显著活性,表明其可在较温和条件下发挥作用,有利于降低工业生产能耗。该酶在低于40 ℃条件下具有较好的温度稳定性,当温度超过60 ℃时,酶活力急剧下降,残留酶活力仅为初始酶活力的40%左右(图5-b)。该酶的pH适应范围相对宽泛,pH 3.0时酶活力为0;pH 4.0时酶活力仅为初始酶活力的22.8%;pH 5.0时酶活力最高,为该酶的最适pH;在pH 5.0~8.0,酶活力力变化较小,残留酶活力维持在80%以上(图5-c)。在pH 5.0~10.0,该酶具有较好的pH稳定性(图5-d)。
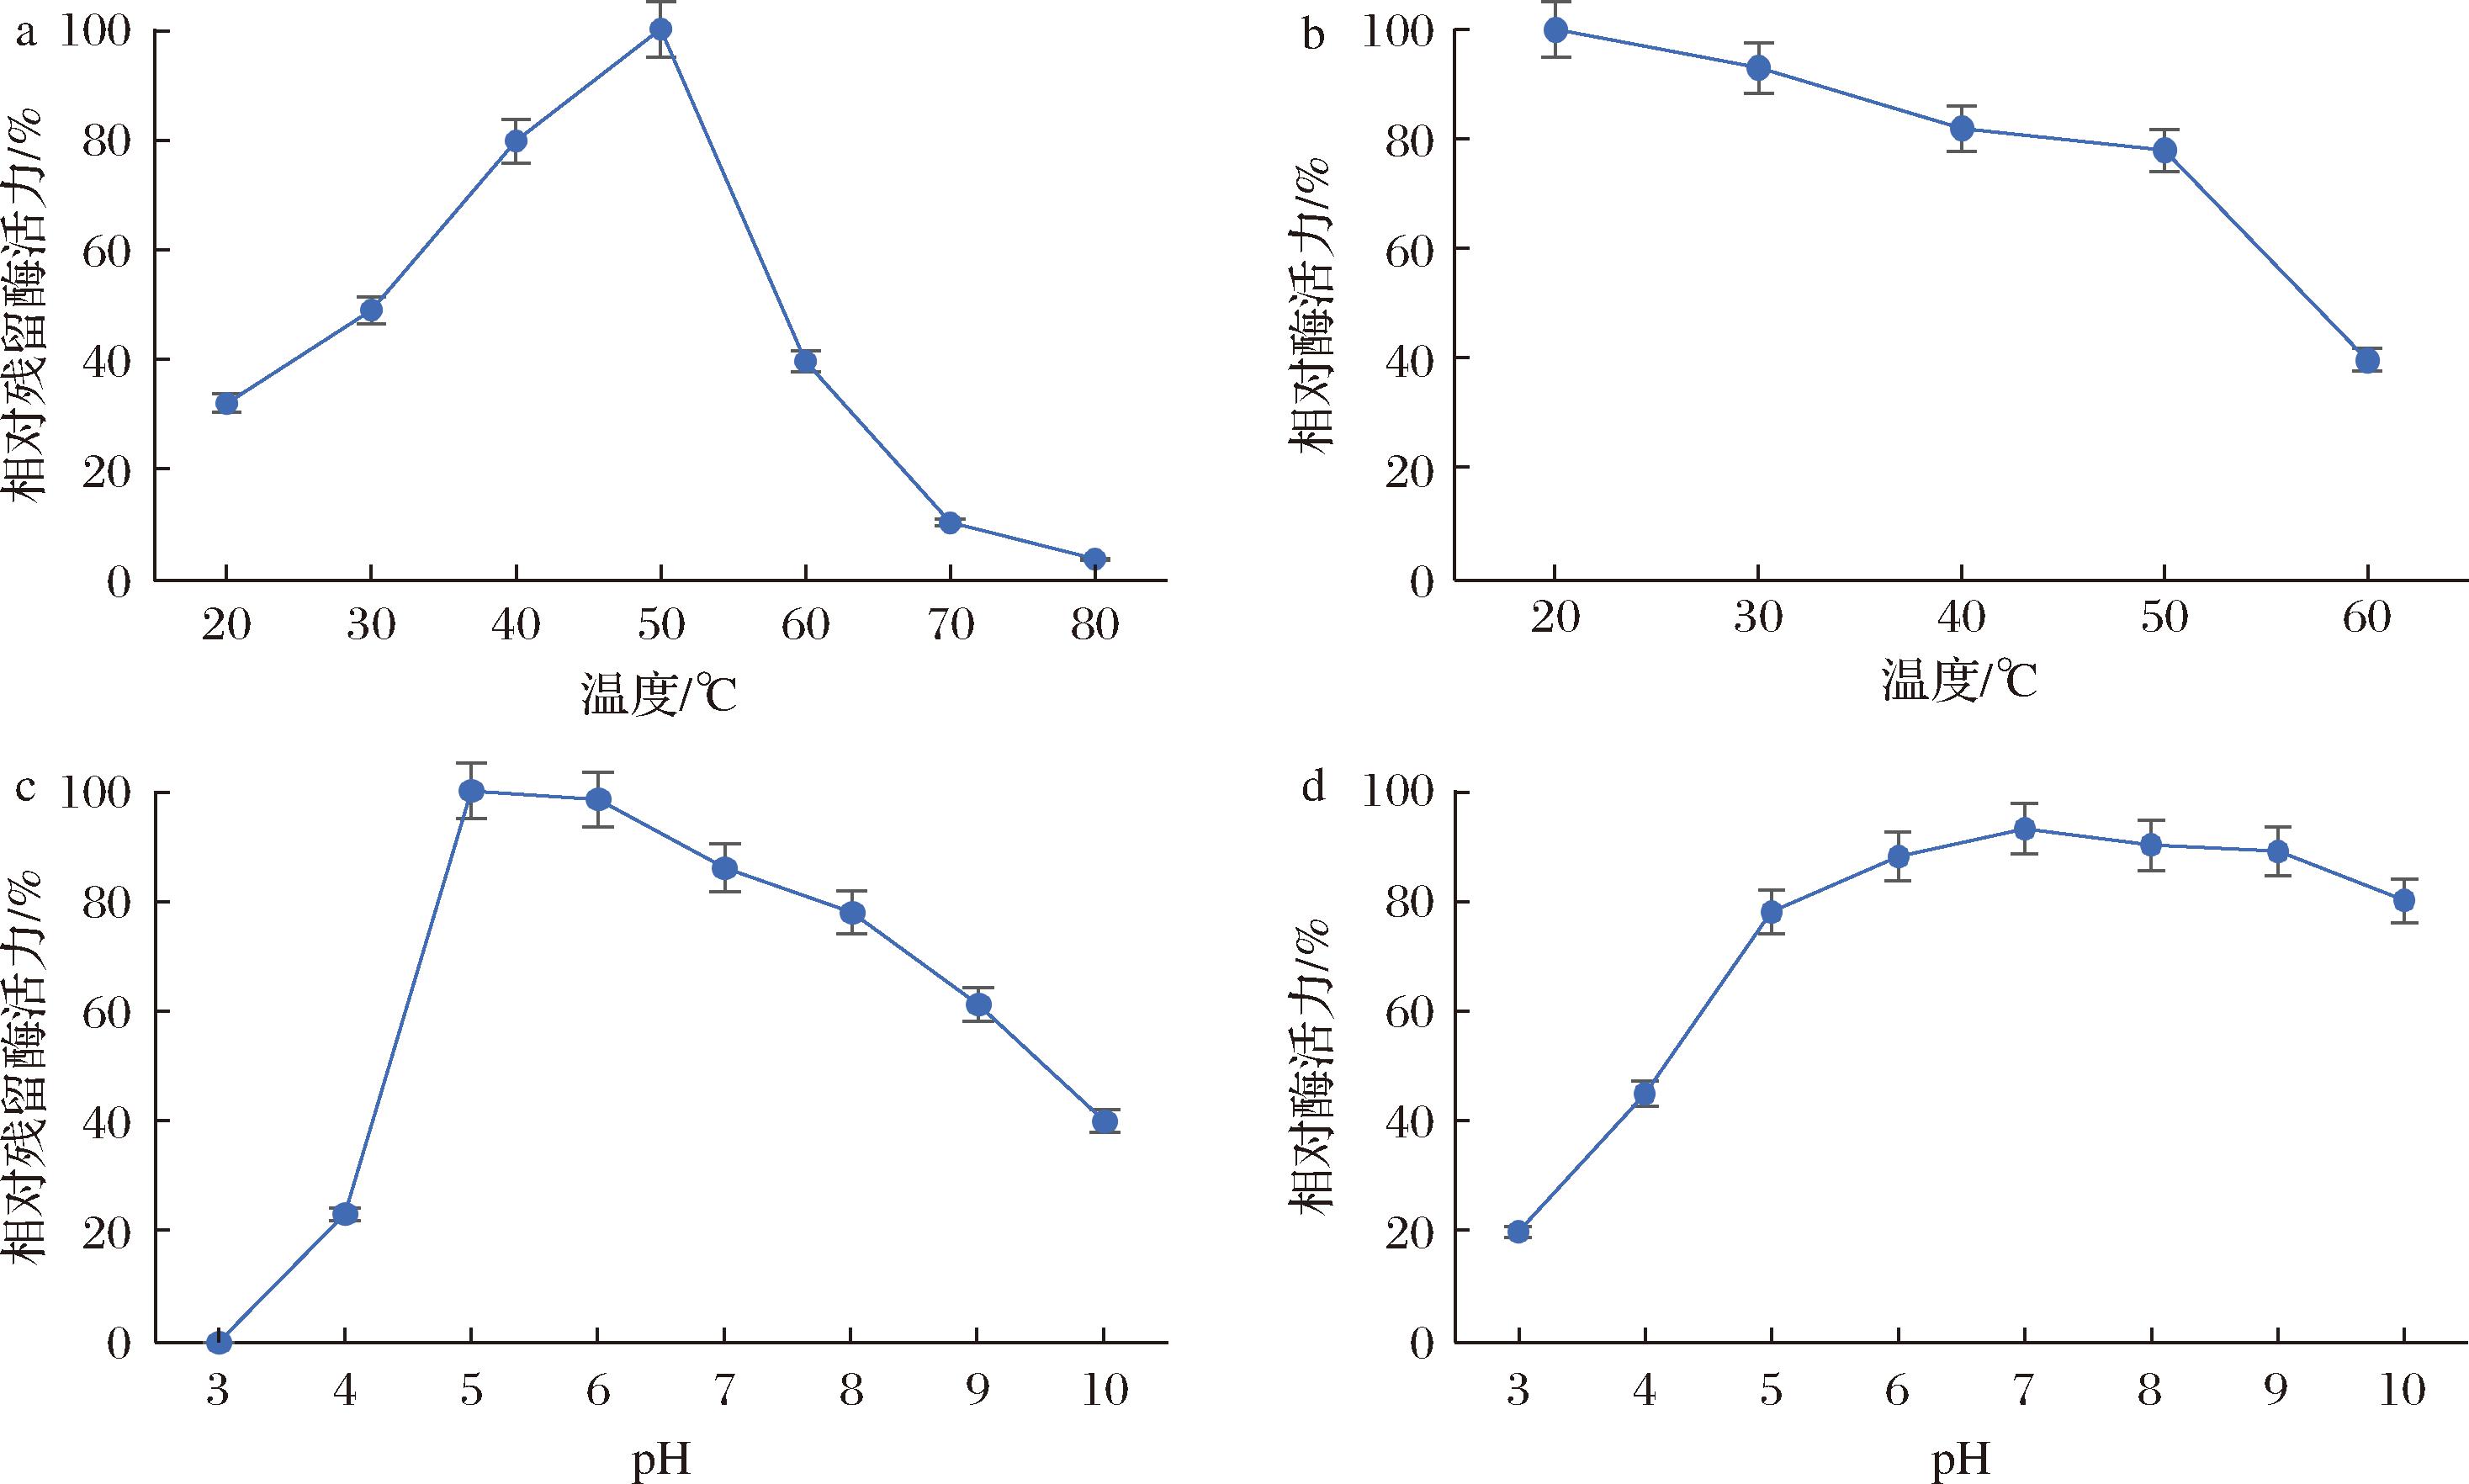
a-最适温度;b-最适pH;c-温度稳定性;d-pH稳定性
图5 重组 β-Gal的酶学性质
Fig.5 Enzymatic properties of recombinant β-galactosidase
不同来源的β-Gal转糖苷活性差异显著,环状芽孢杆菌来源的β-Gal因其高转苷活性成为研究热点。环状芽孢杆菌来源β-Gal的异源高效表达是研究热点之一,但其酶学特性(如最适温度、pH、酶活力)因宿主不同存在显著差异。同源的基因分别在毕赤酵母、枯草芽孢杆菌和环状芽孢杆菌中表达,其酶学性质差异并不显著,但芽孢杆菌宿主表达水平显著高于毕赤酵母宿主,推测宿主的适配性和糖基化是导致表达水平差异的主要原因(表2)。
表2 不同宿主中 β-Gal的表达及酶学特性对比
Table 2 Comparison of expression and enzymatic properties of β-galactosidase in different hosts
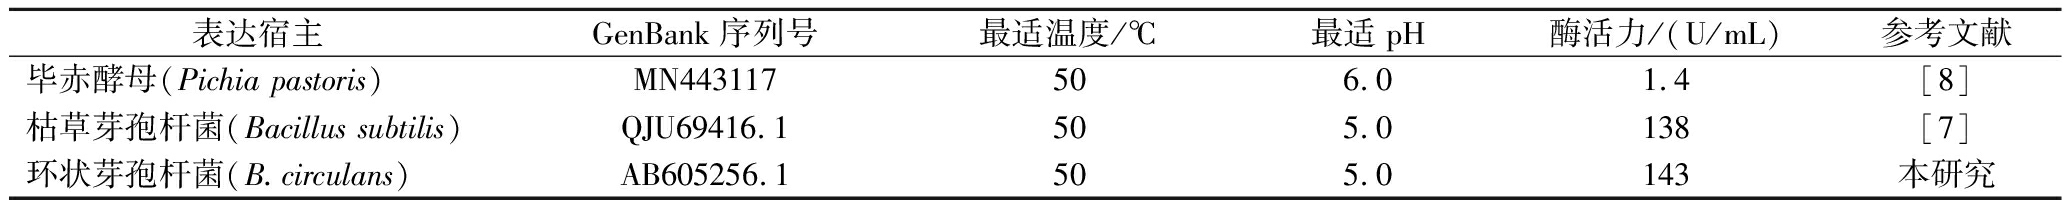
表达宿主GenBank序列号最适温度/℃最适pH酶活力/(U/mL)参考文献毕赤酵母(Pichia pastoris)MN443117506.01.4[8]枯草芽孢杆菌(Bacillus subtilis)QJU69416.1505.0138[7]环状芽孢杆菌(B.circulans)AB605256.1505.0143本研究
本研究在环状芽孢杆菌中实现的同源表达系统,其产物的最适温度(50 ℃)与GOS合成的工业常用温度(45~55 ℃)更匹配,最适pH(5.0)与乳糖底物的自然发酵环境(pH 4.5~5.5)高度契合,且酶活力(143 U/mL)显著高于毕赤酵母(1.4 U/mL),略高于枯草芽孢杆菌异源表达的138 U/mL。结果验证了同源表达在保留酶天然特性、提升催化效率方面的优势,为解决工业生产中酶活力不足的问题提供了新方案。
2.4 重组β-Gal制备GOS
转化率偏低是当前制约β-Gal在GOS工业化生产中广泛应用的核心限制性因素之一,其主要原因在于β-Gal的转糖苷活性较弱,催化过程中水解反应占比偏高,大量乳糖被分解为葡萄糖与半乳糖,而非通过转苷反应合成GOS。本研究对在环状芽孢杆菌中发酵产生的的重组β-Gal进行了GOS制备研究:在底物质量浓度为500 g/L条件下,分别于30、40、50 ℃条件下反应8 h,通过薄层色谱分析对β-Gal的反应产物进行定性分析。薄层色谱结果显示,该β-Gal转苷效果显著,乳糖转化为多糖的量明显高于水解生成葡萄糖的量,且随着温度升高,转化率呈明显提升趋势(图6)。依据GOS检测的国标方法,对50 ℃作用条件下反应体系中各组分含量进行分析检测:通过钙基柱检测各组分中不同糖组分的含量,同时通过氨基柱进一步检测二糖中乳糖占比,最终测算得出GOS的产率为57.4%(图7)。
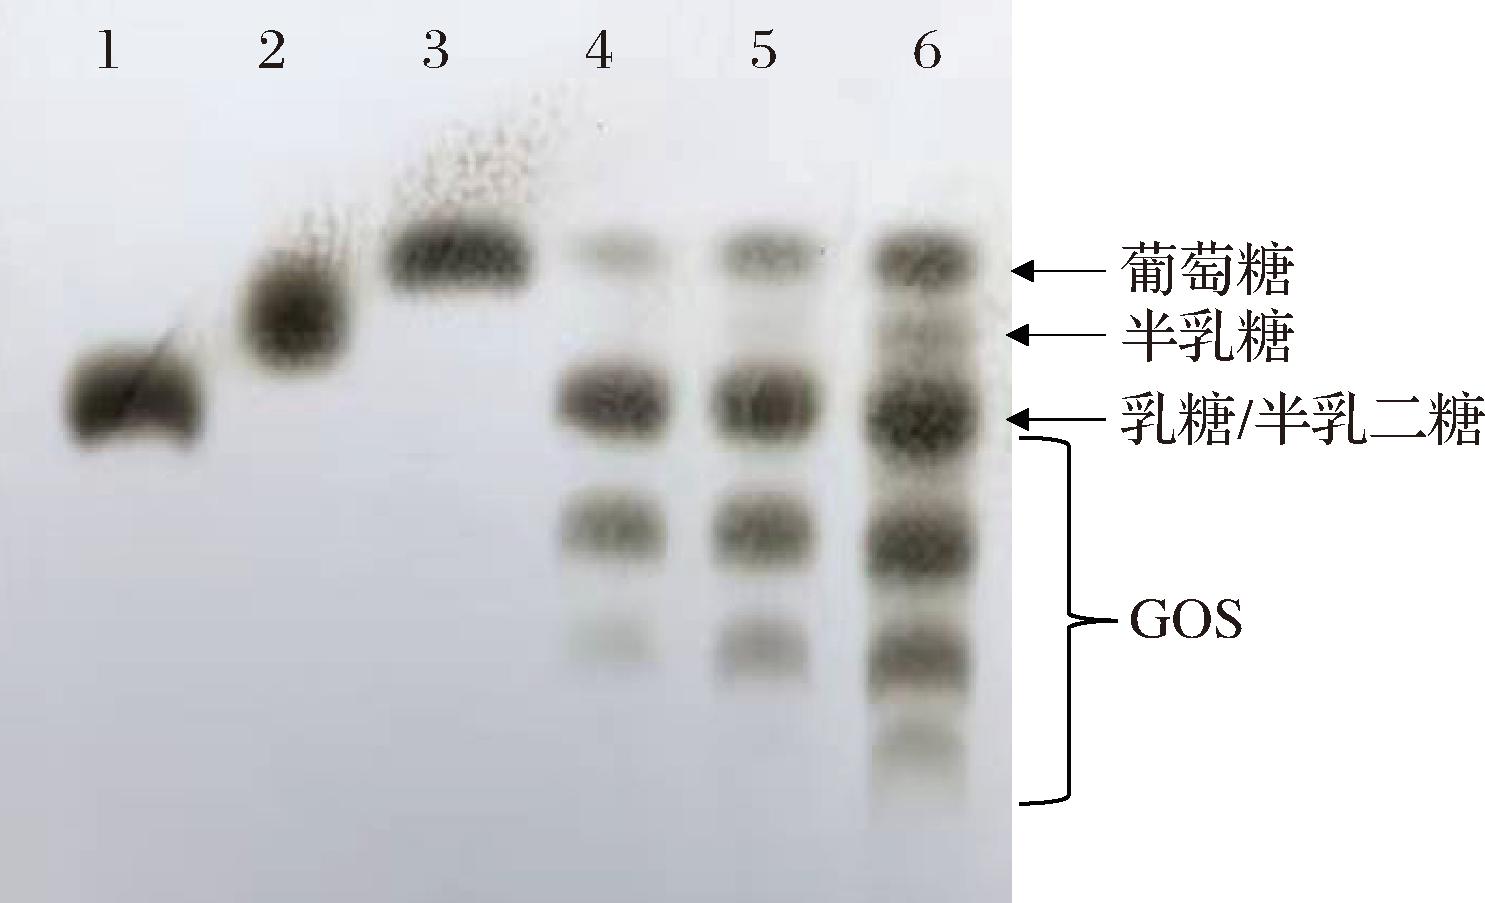
图6 不同温度下重组β-Gal转苷产物的薄层色谱分析
Fig.6 Thin layer chromatography analysis of transglycosylation products catalyzed by recombinant β-galactosidase at different temperatures
注:1-乳糖标准品(1 g/L);2-半乳糖标准品(1 g/L);3-葡萄糖标准品(1 g/L);4-30 ℃转苷产物(稀释100倍);5-40 ℃转苷产物 (稀释100倍);6-50 ℃转苷产物(稀释100倍)。
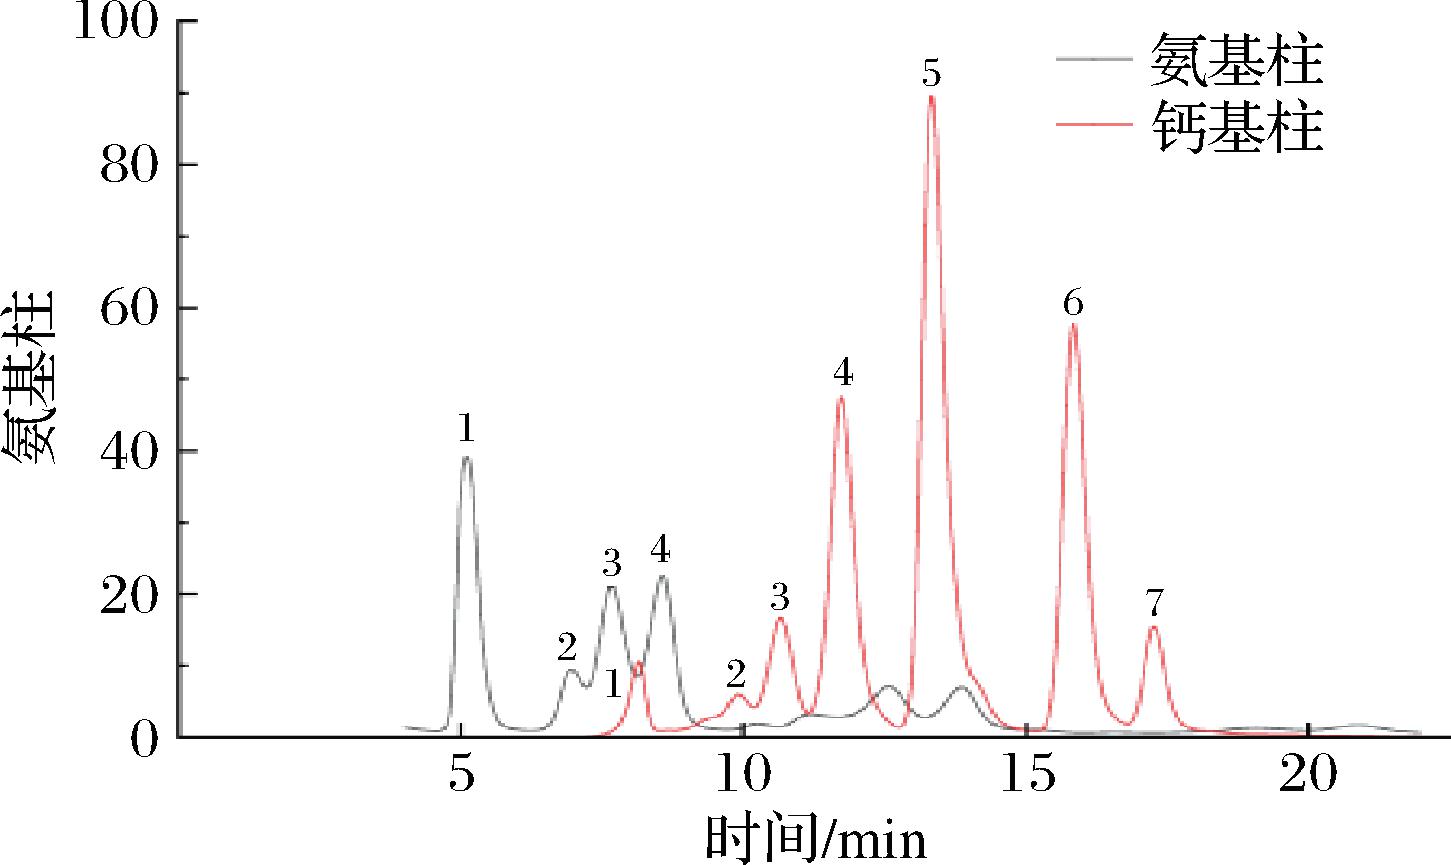
图7 重组 β-Gal转苷产物的HPLC分析
Fig.7 HPLC analysis of enzyme conversion products
注:钙基柱(红色曲线):峰1-六~八糖,峰2-五糖,峰3-四糖,峰4-三糖,峰5-二糖,峰6-葡萄糖,峰7-半乳糖;氨基柱(黑色曲线):峰1-葡萄糖,峰2-低聚半乳二糖,峰3-乳糖,峰4-异乳糖。
为提高GOS的转化率,本研究对酶的添加量、反应时间和反应温度进行优化,设置梯度条件进行酶催化反应,采用HPLC对反应后的酶解产物进行分析,计算GOS的产率。结果显示,酶的添加量对GOS转化率的影响更为显著;50 ℃作为酶的最适反应温度,转化效率更高;GOS转化率随反应时间的延长呈上升趋势。在酶添加量2.5 U/mL、50 ℃条件下,反应17 h 后GOS转化率可达61.4%,产率达到307 g/L(图8)。
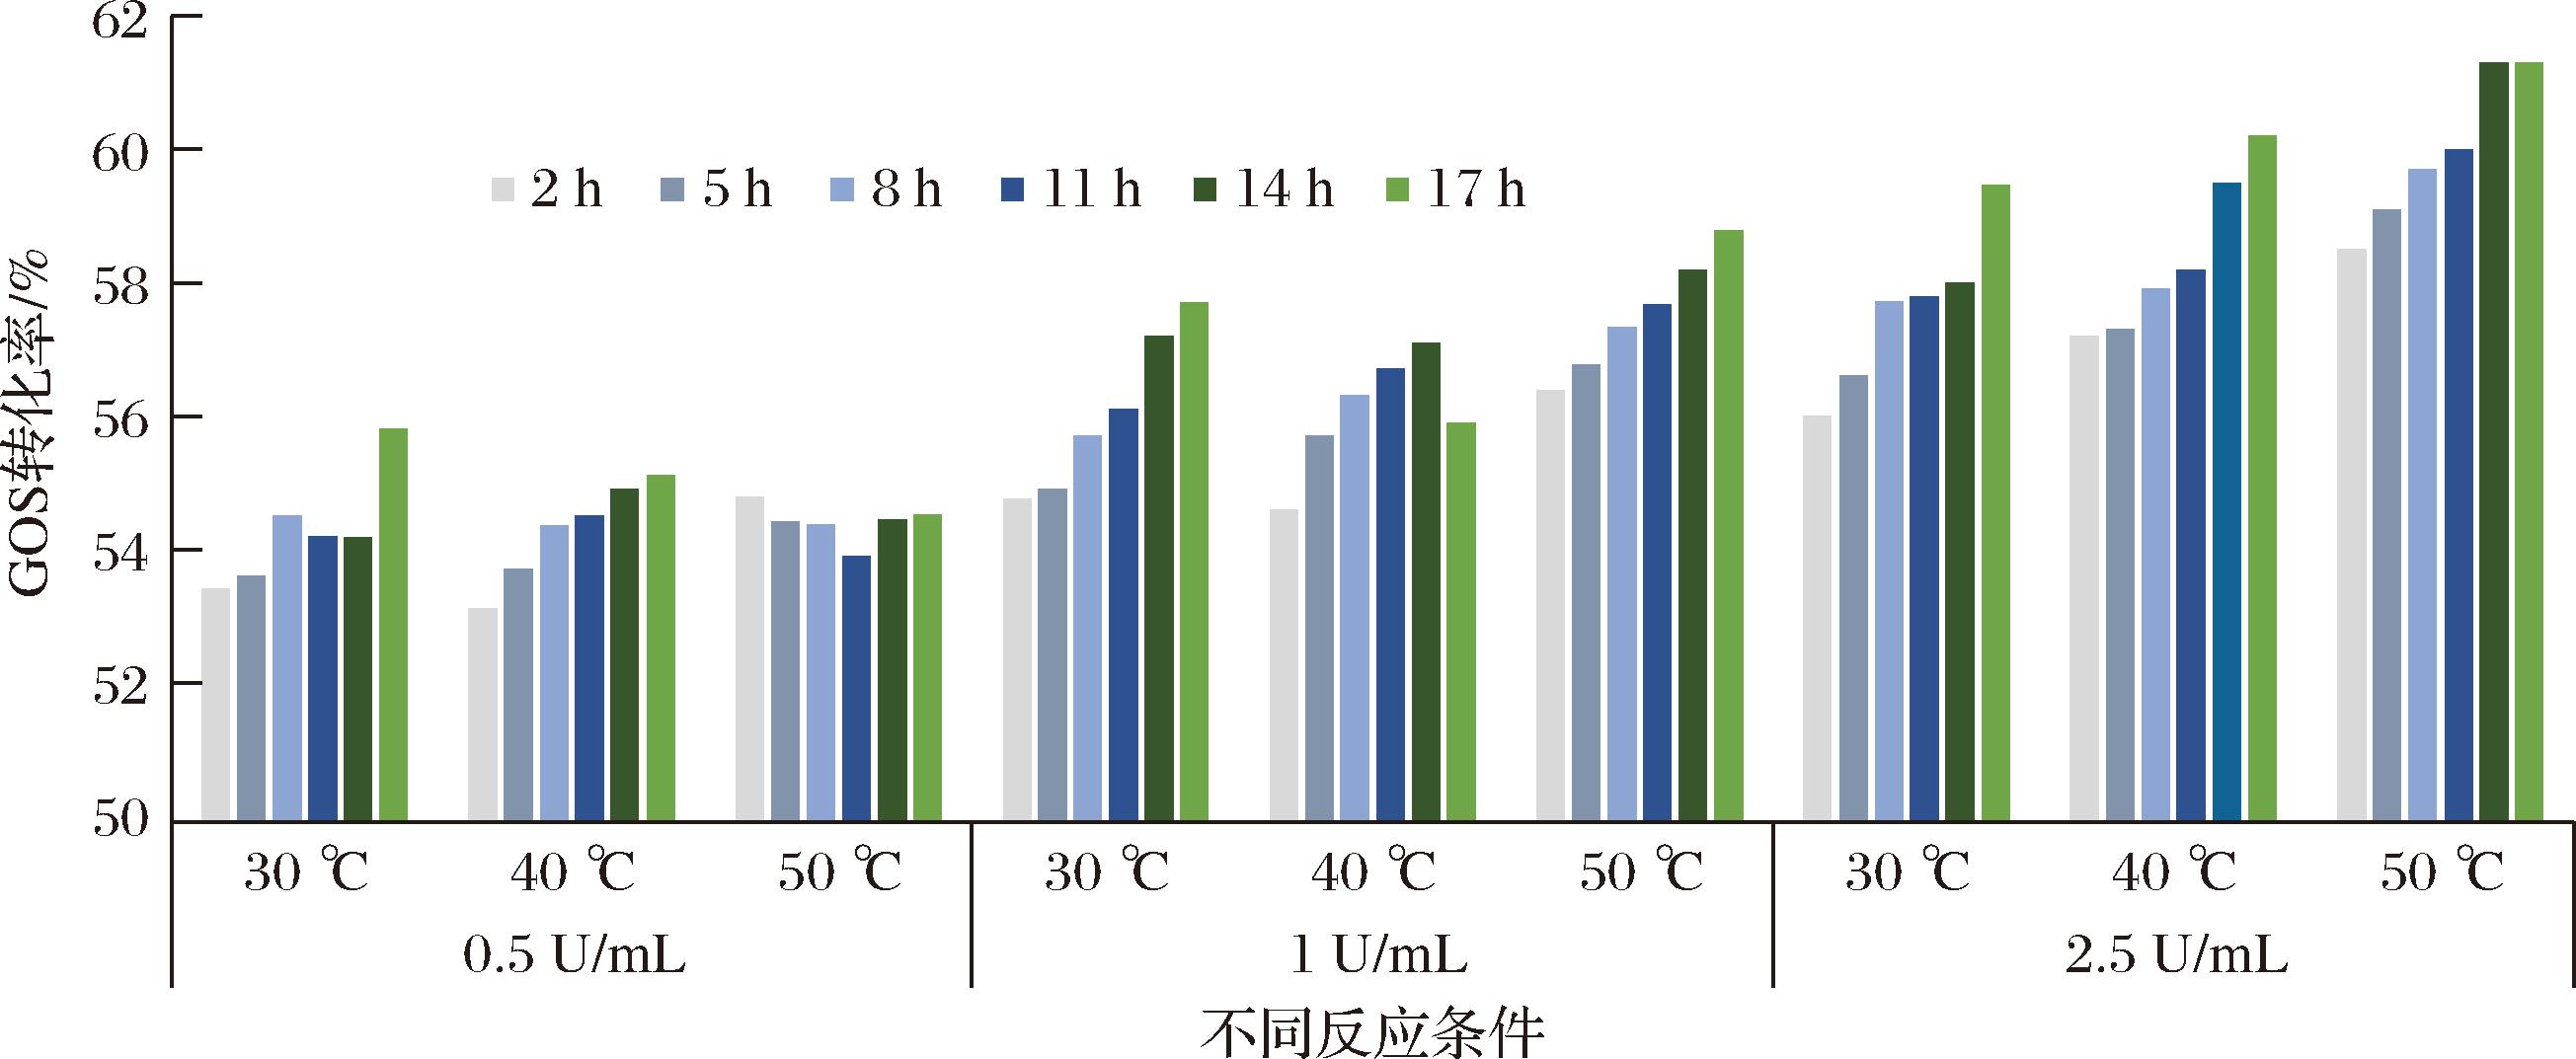
图8 酶添加量、反应时间及温度对GOS合成的影响
Fig.8 Effects of enzyme dosage, reaction time, and temperature on GOS synthesis
3 结论与讨论
芽孢杆菌因具有特殊的限制修饰系统,转化效率较低,外源DNA难以导入,从而限制了其遗传操作。接合转移递送质粒是实现非常规芽孢杆菌转化的有效方法[16]。本研究通过优化其转化操作条件,采用化学转化法成功将β-Gal的表达质粒导入B.circulans细胞,实现了该酶的同源表达。
通常情况下,B. circulans的β-Gal属于胞内酶,这不仅限制了其表达水平,还增加了工业生产成本。筛选合适信号肽实现酶蛋白的分泌表达,有利于简化工业发酵生产流程。枯草芽孢杆菌碱性蛋白酶启动子和信号肽常用于工业酶的表达[17]。本研究采用枯草芽孢杆菌碱性蛋白酶启动子和信号肽,成功实现β-Gal分泌表达,摇瓶发酵上清液酶活力达到了9.86 U/mL,小罐发酵的酶活力达到143 U/mL。
与其他来源的β-Gal相比,环状芽孢杆菌的β-Gal具有转糖苷活性高、作用pH范围为5~7及活性不受Ca2+抑制等优势,受到广泛关注[18]。本研究以500 g/L乳糖为底物进行GOS制备的应用实验,结果显示在50 ℃下,反应17 h,GOS转化率可达61.4%,合成产率达到307 g/L,相较于毕赤酵母[8]和枯草芽孢杆菌[7]中表达的环状芽孢杆菌β-Gal,转化率更高。此外,环状芽孢杆菌β-Gal合成GOS的优势在于其高温稳定性,这有助于降低GOS合成过程中污染风险[19]。本研究结果表明,环状芽孢杆菌同源高效分泌的β-Gal在GOS工业合成领域具有突出的应用价值,研究结果为实现GOS规模化生产奠定了坚实的理论与实践基础。
[1] Gibson G R, Hutkins R, Sanders M E, et al.Expert consensus document:The International Scientific Association for Probiotics and Prebiotics (ISAPP) consensus statement on the definition and scope of prebiotics[J].Nature Reviews Gastroenterology &Hepatology, 2017, 14(8):491-502.
[2] Ben X M, Li J, Feng Z T, et al.Low level of galacto-oligosaccharide in infant formula stimulates growth of intestinal Bifidobacteria and Lactobacilli[J].World Journal of Gastroenterology, 2008, 14(42):6564.
[3] Liu P, Chen Y H, Ma C Q, et al.β-Galactosidase:a traditional enzyme given multiple roles through protein engineering[J].Critical Reviews in Food Science and Nutrition, 2025, 65(7):1306-1325.
[4] Thoma J, Stenitzer D, Grabherr R, et al.Identification, characterization, and expression of a β-galactosidase from Arion species (Mollusca)[J].Biomolecules, 2022, 12(11):1578.
[5] de Albuquerque T L, de Sousa M, Gomes E Silva N C, et al.β-Galactosidase from Kluyveromyces lactis:Characterization, production, immobilization and applications:A review[J].International Journal of Biological Macromolecules, 2021, 191:881-898.
[6] Aburto C, Castillo C, Cornejo F, et al.β-galactosidase from Exiguobacterium acetylicum:Cloning, expression, purification and characterization[J].Bioresource Technology, 2019, 277:211-215.
[7] 许俊勇, 毕然, 夏伟, 等.Bacillus circulans来源β-半乳糖苷酶在Bacillus subtilis中的表达、性质及发酵优化[J].食品与发酵工业, 2022, 48(18):20-27.Xu J Y, Bi R, Xia W, et al.Heterologous expression, properties, applications, and fermentation optimization of β-galactosidase from Bacillus circulans in Bacillus subtilis[J].Food and Fermentation Industries, 2022, 48(18):20-27.
[8] Yan Y R, Guan W S, Li X Y, et al.β-galactosidase GALA from Bacillus circulans with high transgalactosylation activity[J].Bioengineered, 2021, 12(1):8908-8919.
[9] Wang G, Wang H D, Chen Y C, et al.Optimization and comparison of the production of galactooligosaccharides using free or immobilized Aspergillus oryzae β-galactosidase, followed by purification using silica gel[J].Food Chemistry, 2021, 362:130195.
[10] Zhao J H, Niu D D, Liu J Q, et al.Enhancing β-galactosidase performance for galactooligosaccharides preparation via strategic glucose re-tunneling[J].International Journal of Molecular Sciences, 2024, 25(22):12316.
[11] Antošov M, Adamíkov
 J K, Polakovi
 M.Galactooligosaccharide production using immobilized Aspergillus oryzae β-galactosidase, part I:Characterization and influence of reaction conditions[J].International Journal of Molecular Sciences.2025, 26(23):11266.
[12] Cao T, Pzmndi M, Galambos I, et al.Continuous production of galacto-oligosaccharides by an enzyme membrane reactor utilizing free enzymes[J].Membranes, 2020, 10(9):203.
[13] Choi J Y, Hong H, Seo H, et al.High galacto-oligosaccharide production and a structural model for transgalactosylation of β-galactosidase II from Bacillus circulans[J].Journal of Agricultural and Food Chemistry, 2020, 68(47):13806-13814.
[14] Sabir J S M, El-Bestawy E.Enhancement of alkaline protease production in Bacillus circulans using plasmid transformation[J].World Journal of Microbiology and Biotechnology, 2009, 25(11):2021-2027.
[15] Nagy Z, Kiss T, Szentirmai A, et al.β-galactosidase of Penicillium chrysogenum:Production, purification, and characterization of the enzyme[J].Protein Expression and Purification, 2001, 21(1):24-29.
[16] Jeong D E, Kim M S, Kim H R, et al.Cell factory engineering of undomesticated Bacillus strains using a modified integrative and conjugative element for efficient plasmid delivery[J].Frontiers in Microbiology, 2022,13:802040.
[17] Hambraeus G, Persson M, Rutberg B.The aprE leader is a determinant of extreme mRNA stability in Bacillus subtilis[J].Microbiology, 2000, 146(Pt 12):3051-3059.
[18] Rodriguez-Colinas B, Poveda A, Jimenez-Barbero J, et al.Galacto-oligosaccharide synthesis from lactose solution or skim milk using the β-galactosidase from Bacillus circulans[J].Journal of Agricultural and Food Chemistry, 2012, 60(25):6391-6398.
[19] Arnold J W, Simpson J B, Roach J, et al.Prebiotics for lactose intolerance:Variability in galacto-oligosaccharide utilization by intestinal Lactobacillus rhamnosus[J].Nutrients, 2018, 10(10):1517.