鱼露作为一种透明、琥珀色的液体调味品,以其独特的咸鲜风味在饮食中占据重要地位[1]。传统制备工艺中,原料需在高盐环境下密封腌制6~24个月甚至更长时间[2],但冗长的发酵周期严重制约生产效率,且发酵过程中易受微生物污染。为保障产品质量,传统工艺往往添加高浓度盐分,这与现代健康饮食倡导的低盐原则相悖。为此,科研人员开发出保温发酵、酶法发酵、接种发酵等快速酿造技术,以突破传统工艺的局限。
随着低盐发酵技术的推广,鱼露发酵周期已显著缩减,但低盐会造成产品腐败变质,筛选合适的微生物发酵剂用于鱼露发酵是预防其腐败微生物生长繁殖以及提高鱼露发酵品质的重要措施[3],而在实际生产场景中,利用微生物发酵剂实现鱼露快速发酵仍面临诸多挑战。乳酸菌是全球发酵食品领域应用最广泛的有益菌群之一,对酱油[4]、米酒等发酵食品的品质形成具有重要影响。戊糖片球菌(Pediococcus pentosaceus)作为乳酸菌的代表性菌株,已广泛应用于发酵淡水鱼肠[5]和鱼糜[6]等产品的加工,不仅能显著改善产品挥发性风味,还可有效抑制多种腐败微生物生长。据报道,P.pentosaceus可产乳酸或分泌细菌素等抗菌化合物[7],在延长发酵食品保质期、提升卫生质量方面发挥积极作用,同时还具有缓解急性肝损伤和脑炎[8]的潜在功效。
此外,添加微生物发酵剂可改变发酵微环境,进而影响体系内微生物菌群结构,但P.pentosaceus应用于罗非鱼副产物低盐速酿鱼露的工艺优化及多技术联合风味解析研究尚未见报道。现代仪器分析技术的发展确保了多种检测手段在研究发酵食品的风味变化与识别关键风味化合物过程中的应用。其中GC-MS、气相色谱-离子迁移谱(gas chromatography-ion mobility spectrometry,GC-IMS)因具备自动化程度高、分析效率优的特点,在发酵食品加工过程中的监测和控制中广泛运用[5,9-10]。GC-MS技术可提升分析速度并减少芳香类物质损失,GC-IMS技术则能保障化合物鉴定精度,二者协同使用可显著优化风味研究的灵敏度与效率。
本研究以罗非鱼副产品为原料,采用响应面法优化低盐鱼露快速发酵工艺,提取并分析发酵过程中4个不同时间节点的鱼露挥发性物质。分别采用电子鼻、电子舌、GC-MS和GC-IMS技术鉴定鱼露的不同加工时间节点风味特征物质和动态变化规律,旨在开发一款风味品质优良、营养价值均衡的低盐鱼露快速发酵技术。
1 材料和方法
1.1 材料与试剂
罗非鱼加工副产物,阳江市海鲜超市;P.pentosaceus ATCC8041,中国微生物保藏所;风味蛋白酶,上海麦克林生化科技有限公司;MRS液体培养基,青岛海博生物技术有限公司;HCl、H2SO4、NaOH、甲醇(均为分析纯),国药集团化学试剂有限公司。
1.2 仪器与设备
JJ-2高速组织捣碎机,金坛区水北友联仪器厂;HJ-M4磁力搅拌水浴锅,上海赫田科学仪器有限公司;LDZF-50L高压蒸汽灭菌锅,上海申安公司;DHP-9602恒温培养箱,上海一恒科学仪器有限公司;电子天平,上海佑科仪器仪表有限公司;K9864自动凯式定氮仪,海能仪器股份有限公司;AIRSENSE PEN3电子鼻、INSENT-SA402B电子舌,北京盈盛恒泰科技有限公司;GC-MS 8890-7000D气相色谱-质谱联用仪,美国加州安捷伦科技公司;气相色谱-离子迁移谱,德国G.A.S.公司。
1.3 实验方法
1.3.1 发酵罗非鱼调味品的制备
新鲜罗非鱼沿背脊将鱼剖开,洗净鱼腔内膜、血污等,去除鱼肉后的下脚料由鱼头、鱼皮、鱼内脏、鱼骨以及少量黏附在鱼骨上的鱼肉组成。将其清洗,切块后粉碎为肉糜,按照料液比加入蒸馏水,混合均匀后加入0.2 g/100 mL风味蛋白酶,55 ℃、3 h于磁力搅拌水浴锅酶解,酶解结束后加入8 g/100 mL的葡萄糖,121 ℃、20 min高压灭菌锅灭菌,后接种P.pentosaceus。将样品置于37 ℃培养箱培养,每隔5 d取一次上清液。使用双层纱布过滤发酵上清液,然后向滤液中加入2 g/100 mL的盐,并在121 ℃下高压灭菌20 min以结束发酵,取样于4 ℃下离心30 min得到上清液即为鱼露。收集的鱼露发酵样品置于-40 ℃冰箱备用。
1.3.2 发酵液制备
P.pentosaceus的培养:将活化的P.pentosaceus分别在37 ℃ MRS培养基培养48 h,接着以8 000 r/min于4 ℃下离心10 min,过滤上清液后,向沉淀物中加入适量无菌水,稀释使菌液浓度达107~108 CFU/mL作为发酵液。
1.3.3 单因素试验
基于吴朝朝[11]的发酵技术的单因素研究方法稍作修改。于第5天取样后灭酶、离心和过滤后分析检测。以氨基酸态氮(amino acid nitrogen,AA-N)和总氮含量为研究指标,采用单因素试验研究加菌量、料液比、pH值、发酵温度对鱼露的影响,试验水平分别选取加菌量4%、6%、8%、10%、12%;料液比(g∶mL)1∶2、1∶3、1∶4、1∶5、1∶6、1∶7;pH值6、6.5、7、7.5、8;发酵温度27、30、34、37、40 ℃。初步优化发酵条件,确定较佳因素试验参数范围。
1.3.4 响应面优化试验
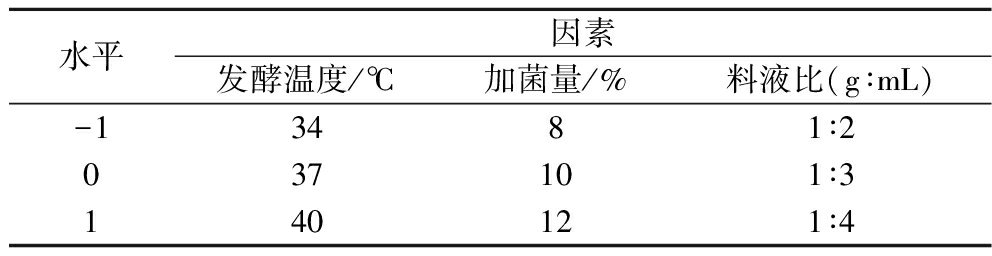
依据Box-Benhnken的中心组合设计原则,在单因素试验后,pH值在单因素试验中的影响并无统计学差异,故未纳入响应面优化变量,pH值固定为6.5,选择发酵温度(A)、加菌量(B)、料液比(C)这3个因素为自变量,以AA-N、全氮作为响应值,使用Design-Expert 13软件,进行三因素三水平试验设计,试验因素及水平见表1。
表1 响应面试验因素和水平
Table 1 Factors and levels of response surface test
水平因素发酵温度/℃加菌量/%料液比(g∶mL)-13481∶2037101∶3140121∶4
1.3.5 AA-N含量的测定
通过GB 5009.235—2016《食品安全国家标准 食品中氨基酸态氮的测定》中甲醛滴定法测定AA-N含量。
1.3.6 总氮的测定
按照GB 5009.5—2025《食品安全国家标准 食品中蛋白质的测定》中凯氏定氮法进行发酵鱼露总氮含量的测定。
1.3.7 电子鼻
按照Yao等[12]的方法,使用电子鼻评估鱼露样品的嗅觉特征。将5 g样品置于密封小瓶中,在50 ℃下孵育45 min。使用连接到管路的空心针刺穿样品瓶密封盖,从顶部空间提取挥发性气体。分析参数如下:样品进样检测时间120 s,内部流速300 mL/min,数据收集以110、115 s的间隔进行。
1.3.8 电子舌
使用电子舌仪分析鱼露样品的味觉特性,取5 mL鱼露发酵样品加入蒸馏水稀释20倍后,过0.45 μm滤膜后上仪器测试。
1.3.9 GC-IMS分析
根据Zhao等[13]的方法调整GC-IMS分析参数,精确移取5 mL鱼露样品置于顶空样品瓶内,于40 ℃、500 r/min条件下恒温摇晃孵育10 min,采用1 mL气密加热注射器,抽取500 μL顶空体积以不分流方式注入自动进样系统。转移管前端、后端温度分别为80、50 ℃,迁移管的温度45 ℃,漂移气体流速150 mL/min,MXT-5色谱柱(15 m×0.53 mm×1 μm),并按照以下程序设置氮气载气(≥99.999%):0~2 min,2 mL/min;2~10 min,10 mL/min;10~20 min,100 mL/min;20~30 min,150 mL/min,持续30 min。使用GC-IMS的数据利用仪器自带软件(NIST和IMS)进行定性分析,每个样品平行测定2次。
1.3.10 GC-MS分析
采用GC-MS分析挥发性物质,吸取5 mL样品与5 g食盐和10 μL内标化合物溶液(2-辛醇,1 μg/μL)充分混合后,置于20 mL顶空瓶中,60 ℃下连续加热、搅拌35 min以提取挥发性化合物,使用配备DVB/CWR/PDMS涂层SPME纤维的自动采样器(PAL RSI 85,美国加州安捷伦)在250 ℃进行固相微提取(solid-phase microextraction,SPME)分离。
色谱条件:DB-WAX毛细管柱(60 m×0.32 mm×0.50 μm);载气为高纯氦气;采用恒流恒压模式,流速1.2 mL/min,不分流;进样口温度80 ℃;升温程序:40 ℃,3 min;以3 ℃/min升至130 ℃,2 min;以6 ℃/min升至190 ℃,2 min;再以10 ℃/min升至240 ℃,3 min。
质谱条件:电子轰击离子源(electron impact, EI),电子能量70 eV;扫描质量范围50~500 m/z;离子源温度230 ℃;接口温度250 ℃,溶剂延长时间3 min。
1.4 数据分析
所有样品结果使用Tukey检验的单因素方差分析评估每组之间的差异,P<0.05表示差异显著。使用Hiplot(https://hiplot.com.cn)生成不同发酵组挥发性化合物的热图。
2 结果与分析
2.1 单因素试验结果
2.1.1 不同料液比对发酵鱼露的影响
鱼露发酵过程中,料液比对氮代谢具有显著影响,结果见电子版增强出版附图1(https://doi.org/10.13995/j.cnki.11-1802/ts.045508,下同)。总氮作为AA-N、肽类及游离氨基酸等含氮物质的总量指标,其峰值表明该料液比下蛋白质分解效率及含氮物质转化速率最优,当料液比为1∶3时达到峰值(P<0.05),显著高于其他实验组。对于AA-N,1∶3组显著高于其他各实验组(P<0.05),可能与缓冲体系如蛋白质降解产物的调节作用相关。因此,控制料液比为1∶2~1∶4最适宜。
a-雷达图;b-主成分分析图;c-载荷图
图1 基于电子鼻数据的鱼露不同发酵阶段判别分析
Fig.1 Discriminant analysis of fish sauce at different fermentation stages based on the e-nose data
2.1.2 不同发酵温度对发酵鱼露的影响
温度对微生物的生长繁殖具有显著影响,根据相关文献报道P.pentosaceus的最适发酵温度大多在30~37 ℃,最高生长范围为42~45 ℃,超出最适温度范围可能导致生长受到抑制[11-12]。由附图2可知,在低盐鱼露发酵过程中,总氮量随着发酵温度升高呈现先平稳后上升的趋势,在40 ℃时全氮量达最高,且与其他温度组相比存在显著差异。对于AA-N含量,呈现逐渐上升后下降的趋势,发酵温度37 ℃时,AA-N含量较高。因此,选取34~40 ℃作为响应面优化值。
a-雷达图;b-PCA图
图2 电子舌雷达图、PCA图
Fig.2 Electronic tongue radar chart and PCA chart
2.1.3 不同发酵pH值对发酵鱼露的影响
发酵pH值对微生物的生长有重要影响,如附图3所示,AA-N含量在初始发酵pH值为6~8,其含量变化幅度较小,表明初始发酵pH值对AA-N的影响相对较弱,未呈现出明显的规律性波动。总氮量在不同发酵pH值条件下整体走势较为平稳,变化幅度细微,说明在pH值6~8区间内,初始发酵pH值对总氮的影响并不显著,体系内含氮物质总量未因发酵pH值的改变而发生明显变化。综上,初始发酵pH值对鱼露发酵过程中的AA-N和总氮影响较小,所以选择初始发酵pH值为6.5发酵鱼露最适宜。
a-二维地形图;b-不同发酵组中挥发性化合物的指纹谱图;c-热图可视化
图3 鱼露样品(FS)不同发酵阶段挥发性成分的GC-IMS光谱
Fig.3 GC-IMS spectra of volatile components in fish sauce samples (FS) at different fermentation stages
注:2-壬酮(2-nonanone)、1-(1H-吡咯-2-基)乙酮[1-(1H-pyrrol-2-yl)-ethanone]、δ-己内酯(δ-hexalactone)、(Z)-3-辛烯-1-醇[3-octen-1-ol, (Z)-]、1,8-桉叶素(1,8 cineole)、2-戊基呋喃(2-pentyl furan)、2-辛酮(2-octanone)、1-庚醇(1-heptanol)、3-甲基戊酸(3-methylpentanoic acid)、(E)-2-庚烯醛[(E)-2-Heptenal]、苯甲醛(benzaldehyde)、二氢-5-甲基-2(3H)-呋喃酮[2(3H)-furanone, dihydro-5-methyl-]、3-甲基-2-环戊烯-1-酮(2-cyclopenten-1-one, 3-methyl-)、5-甲基-2-呋喃甲醇(2-furanmethanol, 5-methyl-)、2-甲基戊酸乙酯(ethyl 2-methylpentanoate)、2,6-二甲基吡嗪(2,6-dimethyl pyrazine)、2-乙基吡啶(2-ethylpyridine)、2-庚酮(2-heptanone)、(E)-2-己烯-1-醇[(E)-2-Hexen-1-ol]、丁酸丙酯(propyl butanoate)、2-丁基呋喃(2-butylfuran)、糠醛(2-furaldehyde)、2-甲基吡嗪(2-methylpyrazine)、3-甲基-2-丁烯醛(3-methyl-2-butenal)、(E)-2-戊烯醛[(E)-2-pentenal]、二甲基二硫醚(dimethyl disulfide)、己醛(1-hexanal)、1-戊醇(pentan-1-ol)、2-己酮(2-hexanone)、(Z)-2-戊烯-1-醇[(Z)-2-penten-1-ol]、甲酸丁酯(butyl formate)、3-甲基-3-丁烯-1-醇(3-methyl-3-buten-1-ol)、乙酸丙酯(acetic acid propyl ester)、2,5-二甲基呋喃(2,5-dimethylfuran)、丁醛(butanal)、2-丁酮(2-butanone)、2-丙醇(异丙醇)(2-propanol)、乙酸乙酯(acetic acid ethyl ester)、乙酸(acetic acid)、苯(benzene)、2-戊酮(2-pentanone)、2,3-戊 二酮(2,3-pentandione)、1,2-丙二醇(1,2-propanediol)。
2.1.4 不同加菌量对发酵鱼露的影响
由附图4可知,总氮量随加菌量的增加呈现先上升后下降趋势,在加菌量为10%时全氮量显著上升(P<0.05),4%和6%时保持在较低水平,表明当加菌量为10%时,P.pentosaceus占据优势,加菌量增加可促进蛋白质水解为氨基酸等小分子含氮物质,对于AA-N,加菌量为8%~10%时,AA-N含量较高且差异不显著;加菌量增至12%时,含量显著下降(P<0.05);4%和6%时维持在较低水平。表明加菌量在8%~10%时更有利于AA-N的积累。因此,选择加菌量为8%~12%用于后续试验。
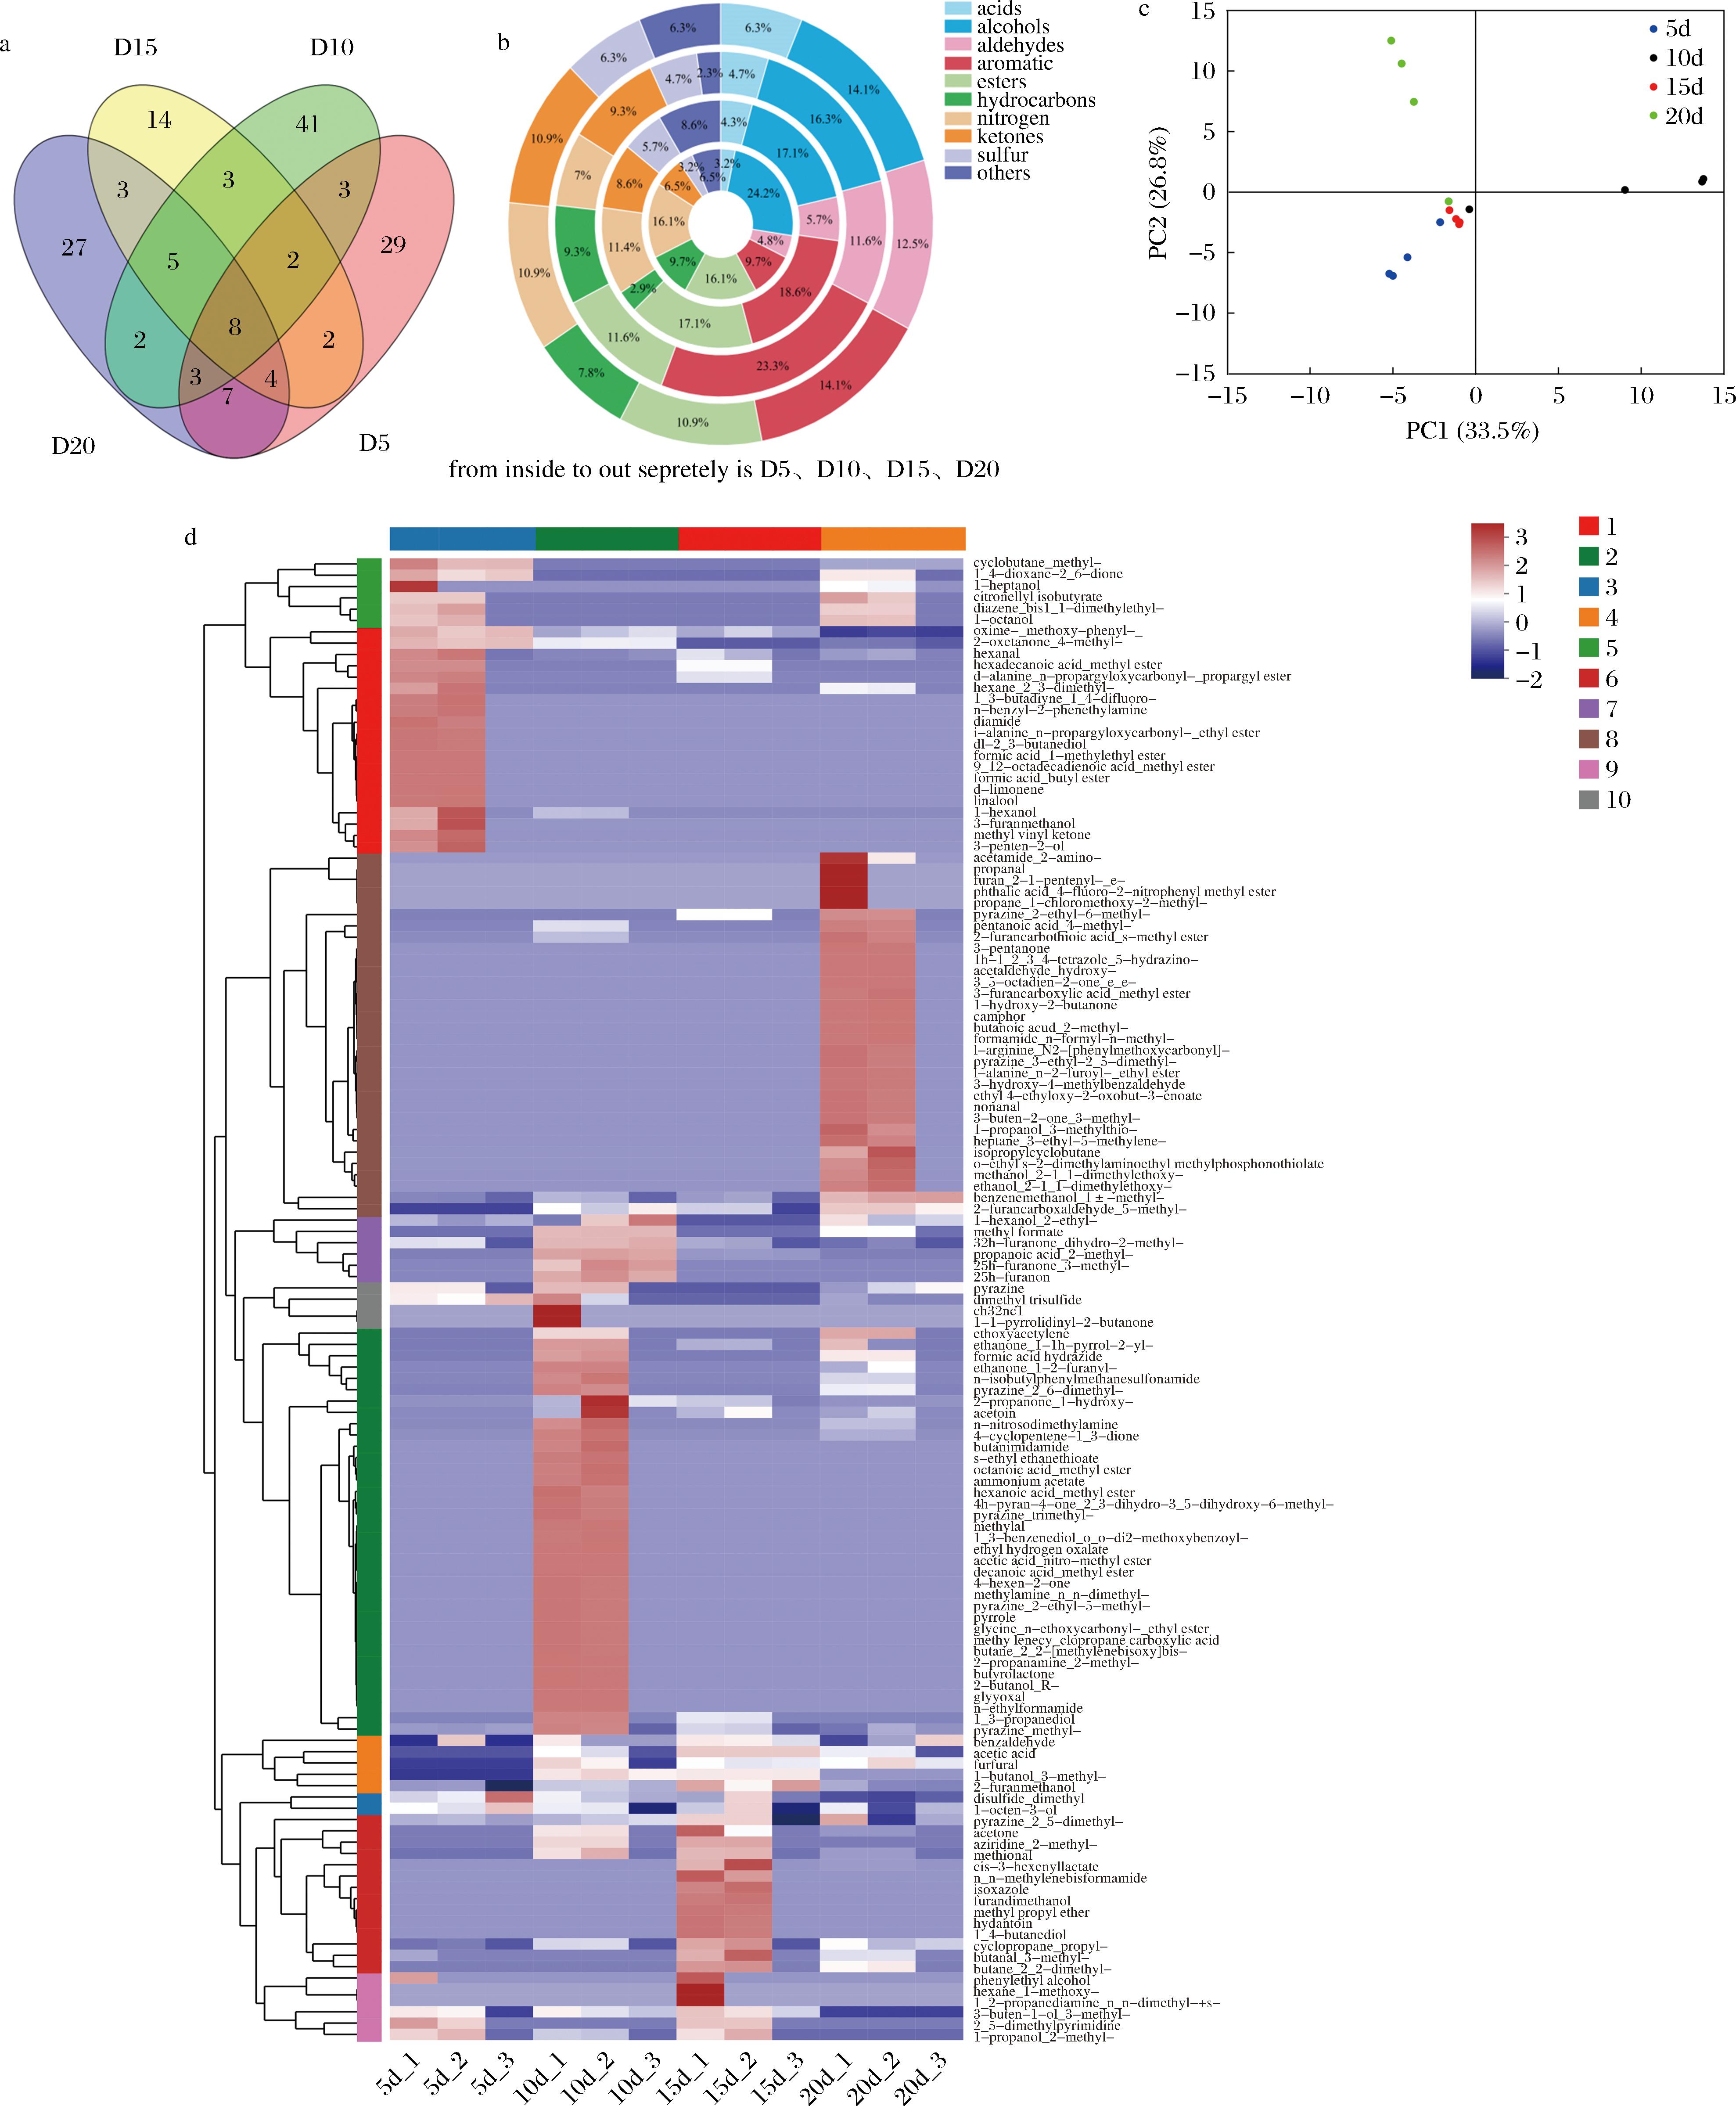
a-挥发性化合物韦恩图;b-挥发性化合物含量环形图;c-PCA图;d-鱼露挥发性化合物的热图分析
图4 GC-MS检测不同发酵阶段鱼露挥发性成分
Fig.4 GC-MS analysis of volatile components in fish sauce at different fermentation stages
注:苯甲醛(benzaldehyde)、3-甲基丁醛(butanal, 3-methyl-)、己醛(hexanal)、甲硫丙醛(3 - 甲硫基丙醛)(methional)、5-甲基-2-呋喃甲醛(2-furancarboxaldehyde, 5-methyl-)、糠醛(furfural);3-甲基-1-丁醇(1-butanol, 3-methyl-)、1-庚醇(1-heptanol)、1-己醇(1-hexanol)、2-乙基-1-己醇(1-hexanol, 2-ethyl-)、1-辛醇(1-octanol)、1-辛烯-3-醇(1-octen-3-ol)、2-甲基-1-丙醇(1-propanol, 2-methyl-)、2-呋喃甲醇(2-furanmethanol)、3-甲基-3-丁烯-1-醇(3-buten-1-ol, 3-methyl-)、3-戊烯-2-醇(3-penten-2-ol)、DL-2,3-丁二醇(DL-2,3-butanediol)、1,3-丙二醇(1,3-propanediol)、1,4-二氧六环-2,6-二酮(1,4-dioxane-2,6-dione)、4-甲基-2-氧杂环丁酮(2-oxetanone, 4-methyl-)、二氢-2-甲基-3(2H)-呋喃酮[3(2H)-Furanone, dihydro-2-methyl-]、甲基乙烯基酮(methyl vinyl ketone)、1-羟基-2-丙酮(2-propanone, 1-hydroxy-)、3-羟基-2-丁酮(acetoin)、丙酮(acetone)、甲酸异丙酯(formic acid, 1-methylethyl ester)、甲酸丁酯(formic acid, butyl ester)、十六烷酸甲酯(hexadecanoic acid, methyl ester)、4-乙基苯甲酸十三碳-2-炔基酯(4-ethylbenzoic acid, tridec-2-ynyl ester)、异丁酸香茅酯(citronellyl isobutyrate)、甲酸2-甲基戊酯(2-methylpentyl formate)、乙酸2-乙烯基乙酯(2-vinylethyl acetate)、9,12 - 十八碳二烯酸甲酯(9,12-octadecadienoic acid, methyl ester)、2-吡啶甲酸(2-pyridinecarboxylic acid)、吡嗪(pyrazine)、草酸烯丙基异丁酯(oxalic acid, allyl isobutyl ester)、草酸二烯丙酯(oxalic acid, diallyl ester)、甲酸甲酯(methyl formate);酸类(acids):2 - 氧代正戊酸(2-oxo-n-valeric acid)、4-(二甲氨基)-3-羟基丁酸[butanoic acid, 4-(dimethylamino)-3-hydroxy-]、乙酸(acetic acid)、2-甲基丙酸(propanoic acid, 2-methyl-)、4-甲基戊酸(pentanoic acid, 4-methyl-)、2-甲基丁酸(butanoic acid, 2-methyl-);2,5,5-三甲基-1-己烯(1-hexene, 2,5,5-trimethyl-)、甲基环丁烷(cyclobutane, methyl-)、丙基环丙烷(cyclopropane, propyl-)、2,3-二甲基己烷(Hexane, 2,3-dimethyl-)、异丙基环丁烷(Isopropylcyclobutane)、D-柠檬烯(D-limonene)、2,3-二甲基丁烷(butane, 2,3-dimethyl-)、环丁烷(cyclobutane)、环戊烷(cyclopentane)、α-甲基苯甲醇(benzenemethanol, α-methyl-)、吡嗪(pyrazine)、2,5-二甲基吡嗪(pyrazine, 2,5-dimethyl-)、甲基吡嗪(pyrazine, methyl-)、2,5-二甲基嘧啶(2,5-dimethylpyrimidine)、双(1,1-二甲基乙基)重氮[diazene, bis (1,1-dimethylethyl)-]、N-苄基-2-苯乙胺(N-benzyl-2-phenethylamine)、3,3-二甲基-2-氮杂环丁酮(2-azetidinone, 3,3-dimethyl-)、4-(二甲氨基)-3-羟基丁酸(butanoic acid, 4-(dimethylamino)-3-hydroxy-)、N-炔丙氧羰基-D-丙氨酸炔丙酯(D-Alanine, N-propargyloxycarbonyl-, propargyl ester)、(S)-N,N′-二甲基-1,2-丙二胺(1,2-Propanediamine, N,N′-dimethyl-, (S)-)、2-嘧啶胺(2-pyrimidinamine)、3-氨基-1,2,4-三嗪(3-amino-1,2,4-triazine)、二甲基三硫醚(dimethyl trisulfide)、二甲基二硫醚(disulfide, dimethyl)、甲硫丙醛(3 - 甲硫基丙醛)(methional)、甲氧基苯基肟(oxime-, methoxy-phenyl-)、1-氯戊烷(pentane, 1-chloro-)、芳樟醇(linalool)、1,4-二氟-1,3-丁二炔(1,3-butadiyne, 1,4-difluoro-)、1-(1-吡咯烷基)-2-丁酮[1-(1′-pyrrolidinyl)-2-butanone]、乙氧基乙炔(ethoxyacetylene)、甲缩醛(二甲氧基甲烷)(methylal)、乙烯基醚(vinyl ether)。在图4-d中,方块的颜色表示样品中挥发性化合物的含量。
2.2 响应面法优化试验设计及结果分析
对附表1试验数据进行二次多项回归拟合,获得总氮对温度(A)、加菌量(B)、料液比(C)的多元回归方程为:Y=0.584 2-0.002 9A+0.002B-0.021 1C-0.000 1AB+0.018 3AC-0.003 8BC-0.091 8A2-0.101 7B2-0.076C2。AA-N对温度(A)、加菌量(B)、料液比(C)的多元回归方程为:Y=0.366 4+0.017 4A+0.007 9B+0.007 4C+0.006 2AB-0.013 5AC+0.004 9BC-0.038A2-0.036 1B2-0.026 2C2。
由附表2和附表3可知可知,对鱼露质量总氮、AA-N回归模型P<0.000 1,极具显著性,失拟项都不显著,说明模型无系统性偏差,误差主要来自随机波动(纯误差)。2个回归模型的相关系数表明拟合程度良好,可用来分析响应值与因素值的关系及变化情况。料液比(C)及AC交互作用对总氮有显著影响(P<0.01),可能是由于底物蛋白质浓度与酶浓度、P.pentosaceus浓度达到动态平衡,既保证酶与底物的充分接触,又避免体系黏度过高或过低[3];同时AC交互作用对AA-N也有显著影响(P<0.01),温度通过调控微生物代谢酶活性和蛋白酶稳定性,调节料液比对氮转化的影响,此时发酵体系的渗透压、溶解氧含量适宜,P.pentosaceus代谢活性最强,蛋白质水解效率最高,P.pentosaceus快速增殖并分解肽为游离氨基酸。
温度和加菌量、温度和料液比、加菌量和料液比这3组因素间有交互作用,对其进行响应面分析,探究它们之间的具体交互规律,回归模型获得的响应曲面图和等高线图见附图5~附图6,结合计算回归模型可以预测出当温度(A)为37.285 ℃、加菌量(B)为10.106%、料液比(C)为1∶2.97,鱼露总氮和AA-N含量分别可达到0.583、0.368 g/100 mL。
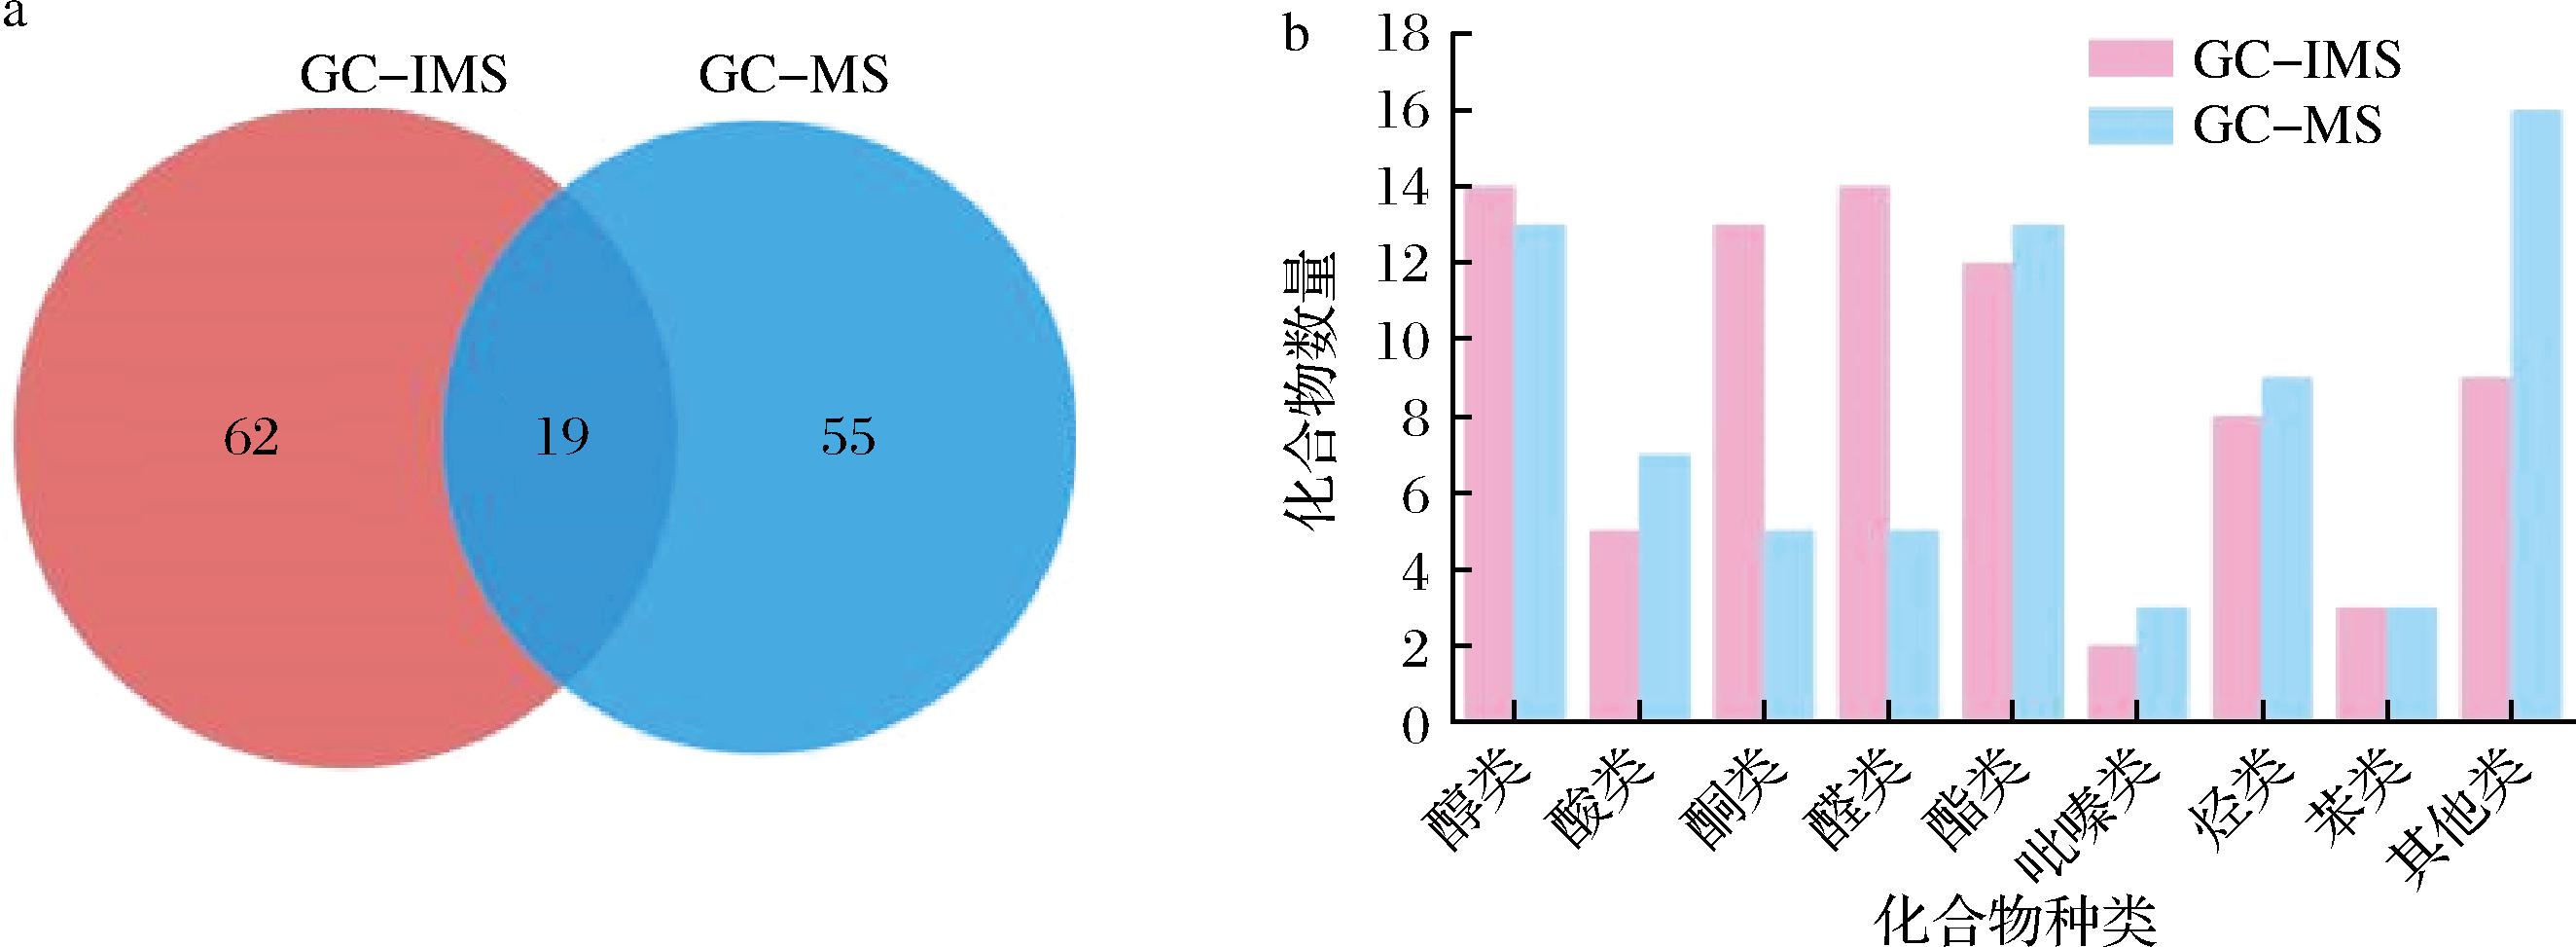
a-韦恩图;b-柱状图
图5 挥发性化合物物种比例的韦恩图和柱状图
Fig.5 Venn diagram and bar chart of volatile compound species proportions
2.3 最佳工艺条件试验验证
为验证回归模型的预测能力及可靠性,采用AA-N含量和总氮含量为响应因素进行验证。考虑试验的可操作性,在最优工艺条件(料液比1∶3、加菌量10%、发酵温度37 ℃、pH值6.5)下进行3组独立平行实验,发酵周期为5 d。结果如附表4显示,鱼露总氮和AA-N的实验平均值分别为(0.567±0.015)、(0.356±0.011) g/100 mL,与模型预测值的相对误差分别为2.74%和3.26%,绝对误差分别为0.016、0.012 g/100 mL,说明模型预测值与实验实际值无显著性差异,该回归模型的预测精度可靠,可用于低盐鱼露发酵工艺的实际参数调控。
2.4 发酵鱼露的物理化学指标变化
附图7展示了应用上述最佳工艺条件酿造的鱼露,AA-N和全氮含量呈波动上升趋势,可能是因为P.pentosaceus随着发酵进行(0~20 d),菌体数量增加,分解罗非鱼下脚料中蛋白质产生AA-N的能力增强,含量逐步上升。根据鱼露通行准则[14],达到要求AA-N≥0.4 g/100 mL,总氮≥0.6 g/100 mL,李琰等[3]对低盐自然发酵鱼露(18%)的AA-N质量浓度进行检测,达到0.73 g/100 mL,与本结果相似。
2.5 电子鼻结果分析
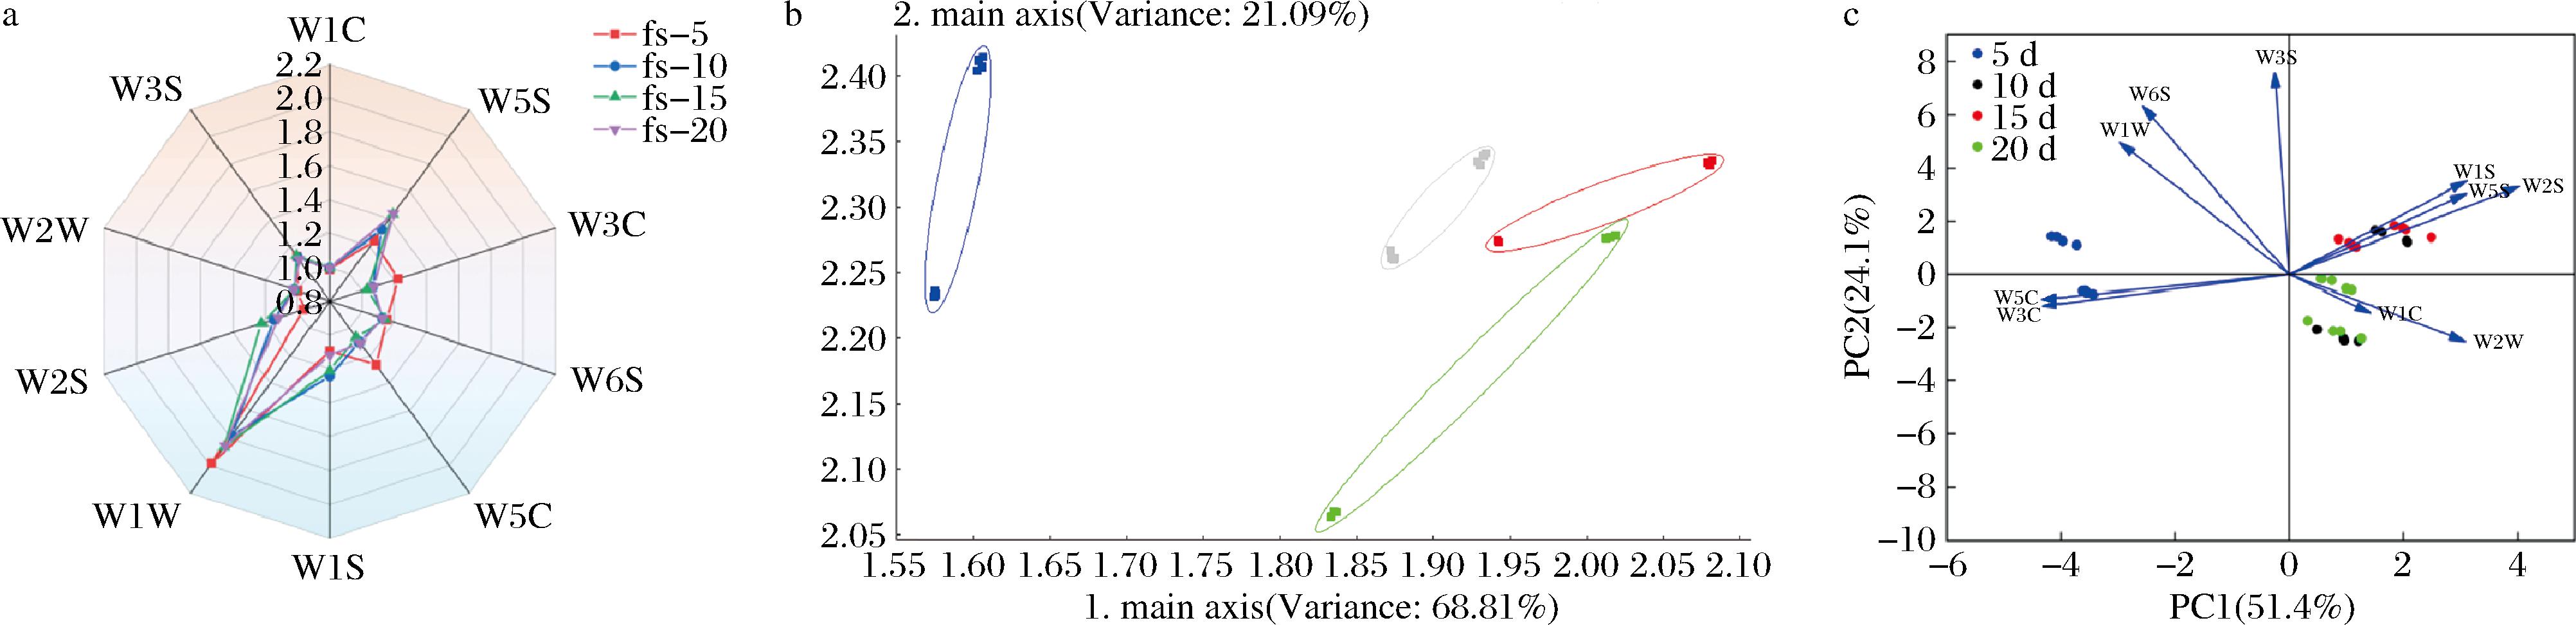
本研究采用电子鼻配备了10个金属氧化物气体传感器,具有不同的响应特性[15]。如图1-a的雷达图直观呈现不同发酵时间鱼露对传感器的响应差异,结果显示,W1W、W2S、W1S和W5S的响应信号更显著,表明该鱼露可能具有较高的萜烯类、含硫化合物和芳香族化合物丰度,与Ma等[16]报道的鱼露发酵1年的sulfur-organic、sulf-chlor、broad range、arom-aliph flavors这些风味强度较高的结论一致。此外,发酵鱼露在5 d时W5S、W3C、W1W响应稍强,表明发酵初期的芳香族化合物浓度稍高。
通过主成分分析(principal component analysis,PCA,图1-b)解析鱼露样品间的香气差异,PC1和PC2两个主成分贡献率达到89.9%,足以表征样品核心信息。样品在发酵后期(15、20 d)样品聚类紧密,表明在后期阶段具有相似的整体风味特征。发酵5 d的样品远离聚类区,凸显前期与后期风味差异显著。
图1-c的载荷图说明了不同变量如何促进类别区分[17]。传感器的坐标离坐标原点越远,它们对主成分的贡献就越大,反之亦然。PC1解释了51.4%,与W1S、W2S、W1C、W5S、和W2W传感器呈正相关,与W1W、W3S、W3C、W6S和W5C传感器呈负相关,可以观察到,不同发酵时间的鱼露在图中被清楚地分开,10、15、20 d位于PC1的正轴上,5 d位于PC1的负轴上。在10、15 d鱼露中,W1S(宽谱甲烷)、W2S(广谱醇类)和W3S(甲烷-脂肪族)贡献突出,表明该阶段具有更高的上述化合物丰度。在发酵20 d中,W1C(芳香族)、W2W(芳香族、含硫化合物)可能对其贡献增强,表明具有更高的芳香族化合物丰度。这与图1-a中的雷达图结果一致。
2.6 电子舌结果分析
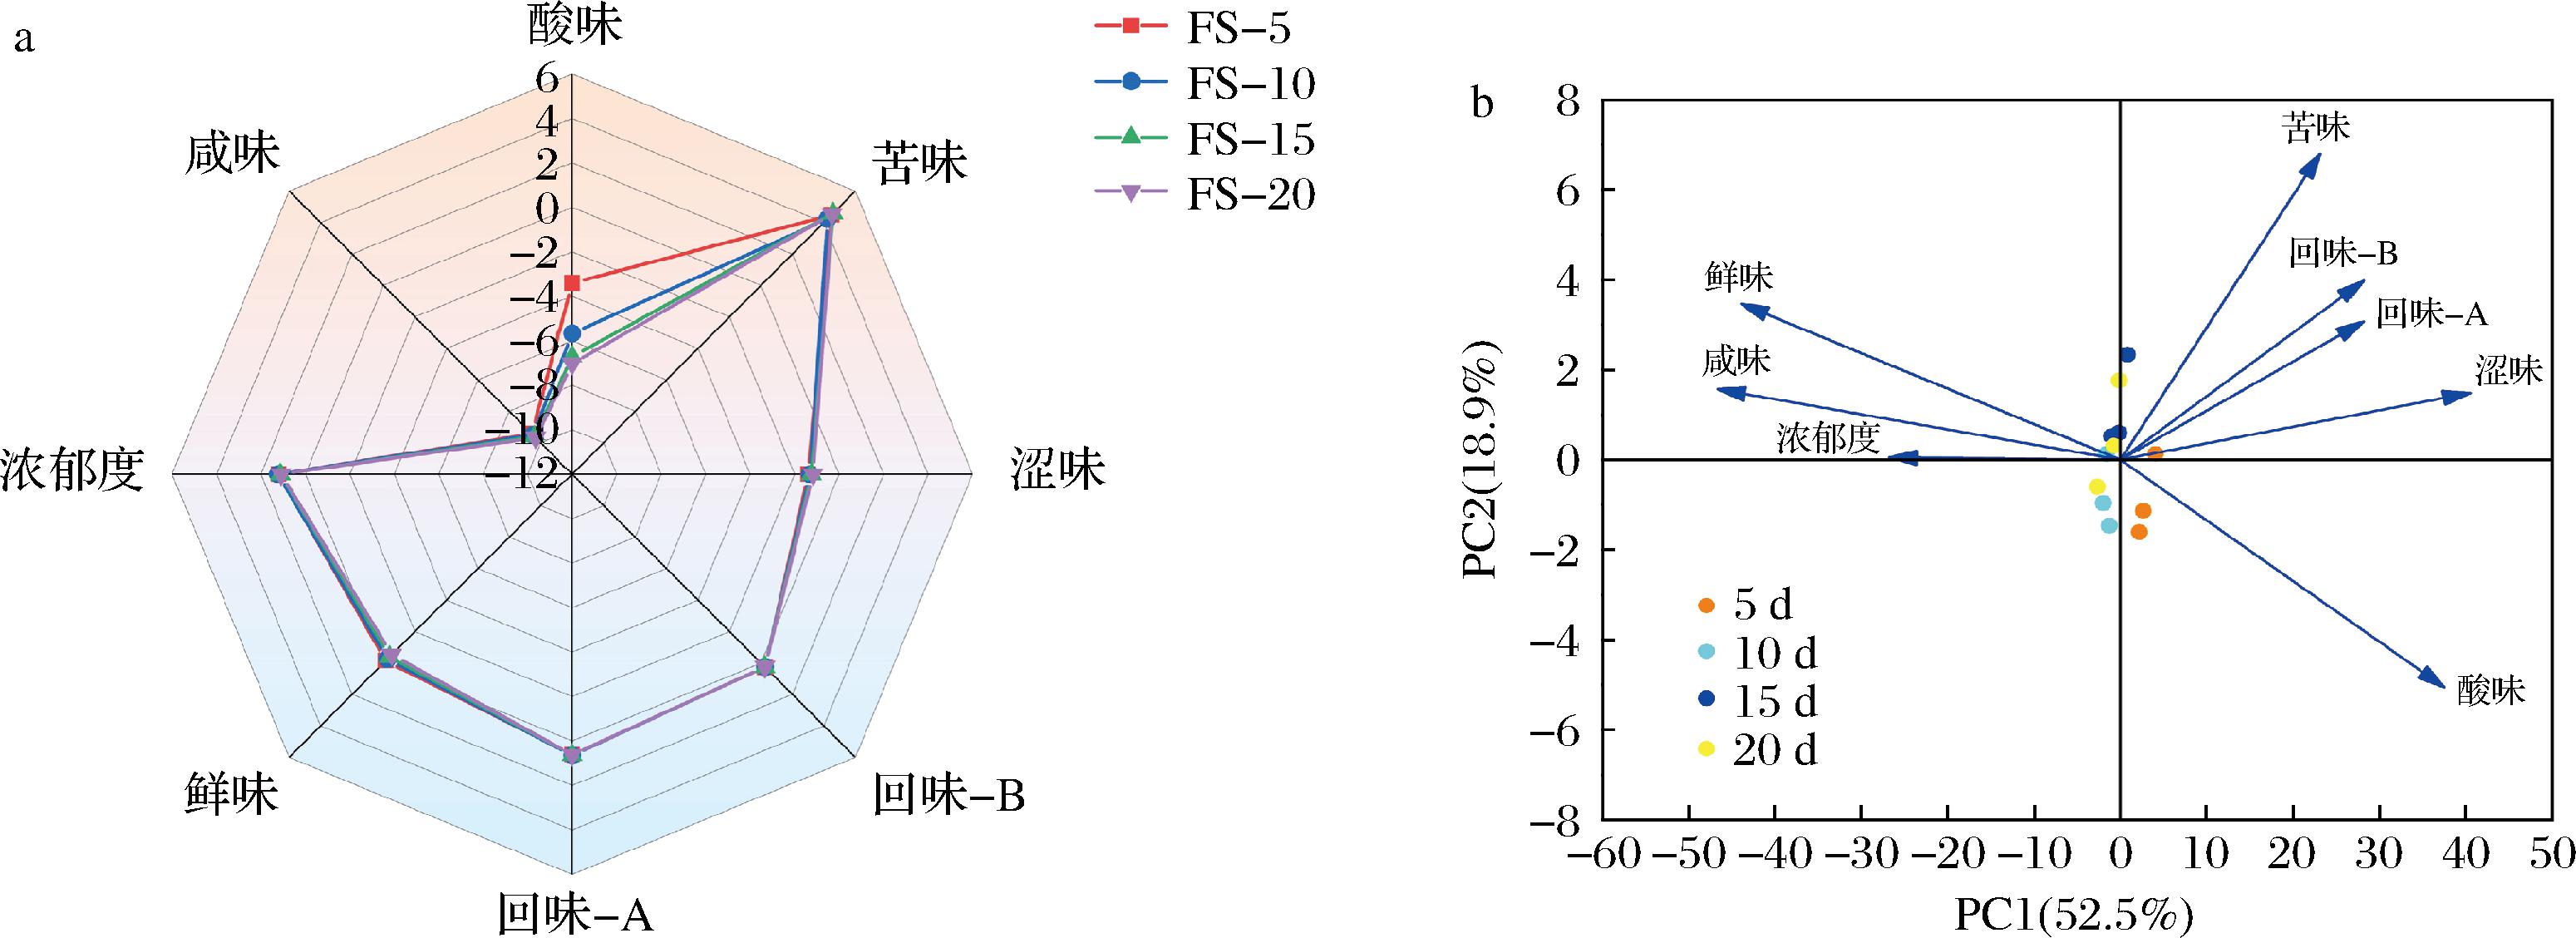
电子舌机制与电子鼻相似,可以通过电子传感器检测味觉特性,图2-a显示了不同时间发酵鱼露的味道雷达图,不同发酵时间的鱼露在苦味、涩味、鲜味、咸味、回味-B、回味-A和浓郁度(回味-鲜味)方面无明显差异(P>0.05),但酸味在鱼露各组间存在显著差异(P<0.05)。如图2-b所示,PC1与苦味、酸味、回味-A、回味-B和涩味呈正相关,与鲜味、浓郁度、咸味呈负相关,不同发酵时间鱼露在评分图中部分分开,回味-A相对较高,20 d时,鲜味和咸味相对较高。
2.7 GC-IMS结果分析
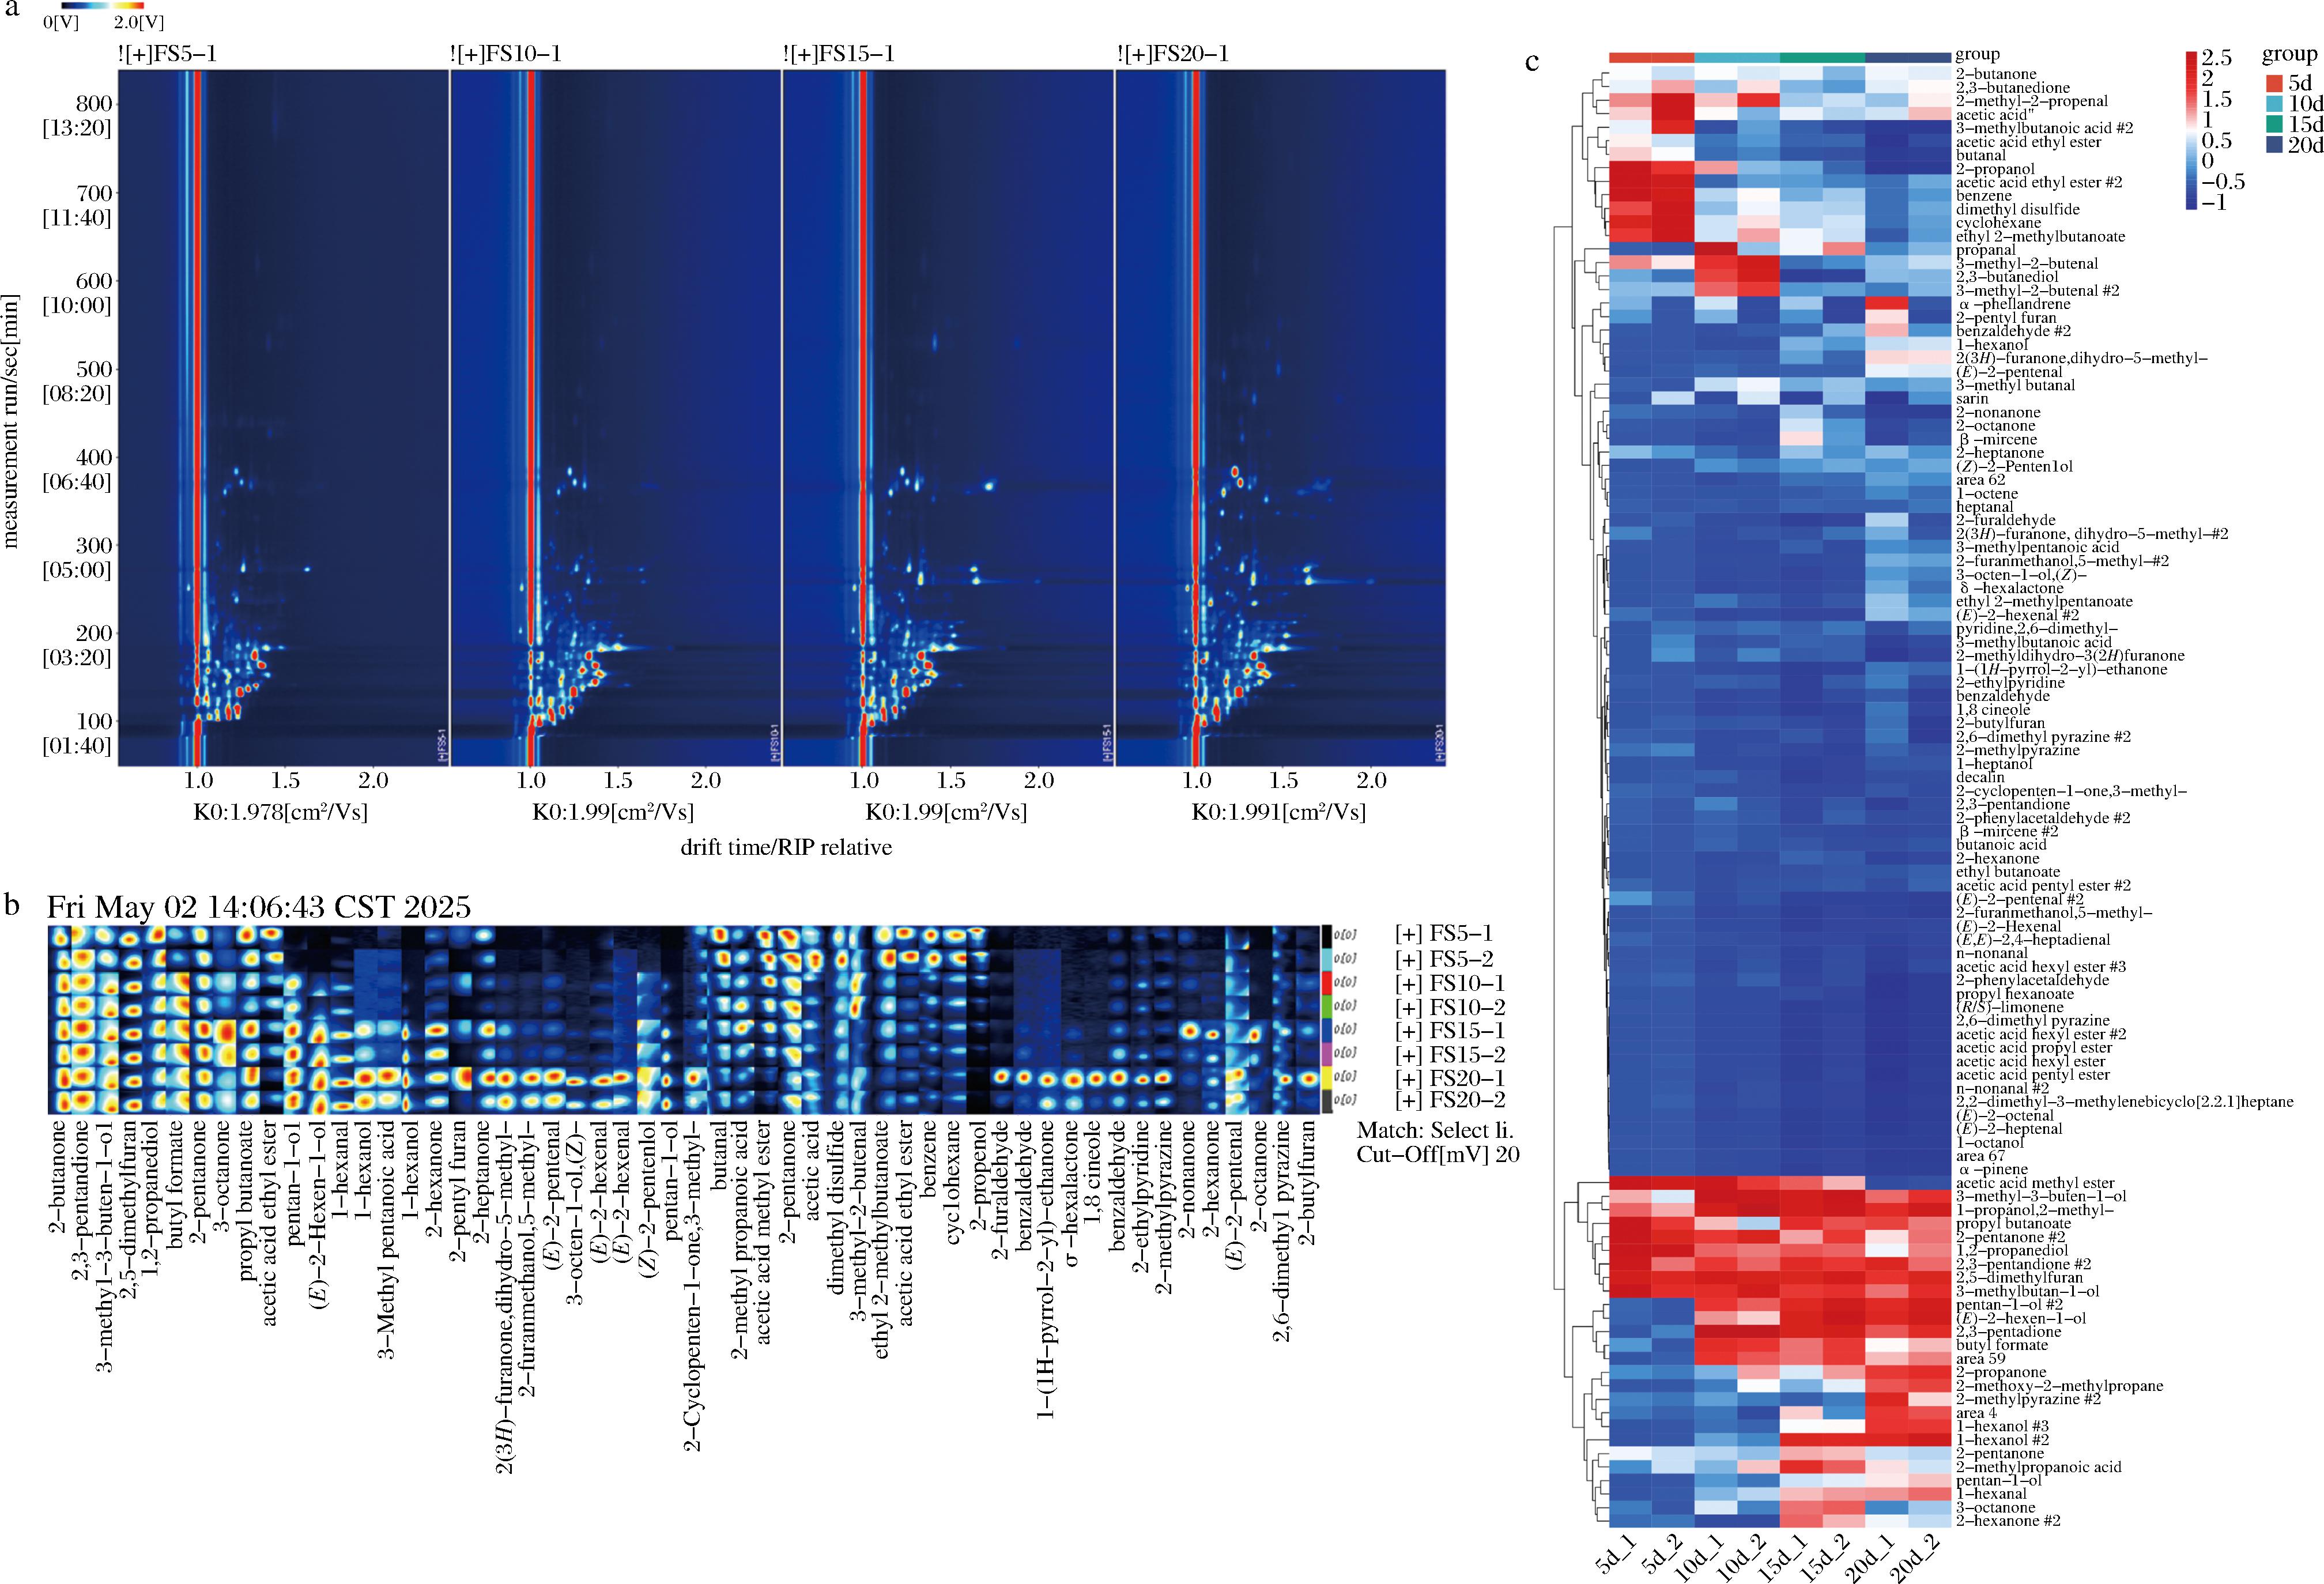
GC-IMS是将气相色谱的分离能力与离子迁移谱的高灵敏度检测特性相结合的技术,可以分离和鉴定复杂样品中的醛、醇、酮、胺等挥发性化合物[18],图3-a的地形图每个峰都代表一种挥发性化合物,为研究不同发酵时间下发酵鱼露的香气化合物的变化,从信号中筛选了110个点(附表6),有效香气化合物位于漂移时间为1.0~2.5 s和保留时间为100~800 s的地形图区域。检测到的香气化合物包括11种醛、11种酮、13种醇、6种酸、10种酯、10种苯类化合物和17种其他化合物,有些化合物是通过单体和二聚体在不同漂移时间检测到的,并非单一信号[18]。
为进一步探究P.pentosaceus发酵对香气的影响,通过画廊图分析了不同发酵时间下FS香气化合物的差异和组织特异性分布(图3-b),随发酵时间的变化,香气化合物的含量也发生了比较大的变化。2-丁酮、甲酸丁酯、2,3-戊二酮、2,5-二甲基呋喃、3-甲基-3-丁烯-1-醇、1,2-丙二醇、2-戊酮、乙酸乙酯、3-辛酮、1-己醇、2-己酮、2-戊基呋喃等随着发酵时间的增加逐渐增高;甲酸甲酯、乙酸乙酯、正丁醛、环己烷、2-丙酮等含量逐渐降低;部分呋喃化合物和烯醛类化合物仅存在于发酵15、20 d的时候,如2H-5-2(3H)呋喃酮、5-甲基-2-呋喃酮、(E)-2-戊烯醛、(E)-2-己烯醛、2-甲基吡嗪等;在20 d的时候2-呋喃醛、2-甲基吡啶、2-乙基吡啶、苯甲醛、2-辛酮、2-丁基呋喃的含量较高。总体来说,在20 d中,酸、酮、醛、酯和其他物质的含量增加。与发酵初期相比,化合物的多样性增加。
2.8 GC-MS结果分析
鱼露风味特征与挥发性化合物密切相关,GC-MS分析显示鱼露中共鉴定出78种挥发性化合物(附表6),P.pentosaceus发酵5、10、15、20 d样品分别检出62、70、64、63种(图4-a),涵盖醛、醇、酯、酮等9类化合物。总挥发性化合物含量呈先升后降趋势,从5 d 的247.35 μg/mL升至15 d的254.67 μg/mL,20 d显著降至142.78 μg/mL(P<0.05);发酵过程中碳氢化合物持续减少,酸、醛、酯、酚类物质显著增加(P<0.05,图4-b)。PCA与热图分析(图4-c、图4-d)可有效区分4个发酵时期样品,发酵初期成分多样性突出,后期特有成分减少,推测与微生物代谢趋于稳定、成分向特征风味收敛相关。
本研究检测到12种醇类(含饱和与不饱和醇),饱和醇主要通过氨基酸脱氨代谢或脂肪酸β-氧化途径形成,本研究中检测到的饱和醇以C5~C8链长为主,最佳工艺条件10%的加菌量使P.pentosaceus大量增殖,其分泌的脂肪酶可加速脂质水解,生成脂肪酸前体,再通过β-氧化途径转化为3-甲基-1-丁醇[19],在10~15 d含量较高,为发酵中期贡献典型果香和麦芽香气。37 ℃可促进原料中磷脂与甘油三酯的轻度氧化,生成不饱和脂肪酸(如亚油酸),进而转化为1-己醇[19],其在5 d含量最高(5.70 μg/mL),20 d降至0.32 μg/mL,可能是发酵后期脂质氧化强度减弱。4种不饱和醇均在发酵中期呈现含量峰值,其中1-辛烯-3-醇主要赋予蘑菇香气,被称为水产品中主要的醇化合物[20],其为关键风味化合物,与先前的研究一致[21]。
醛类化合物在发酵过程中通过脂质氧化或氨基酸分解代谢形成,其会形成淡淡青草、肉香、麦芽味道[22]。6种醛类呈现先升后降的趋势,包括3-甲基丁醛、苯甲醛、己醛、甲硫醛、5-甲基糠醛、糠醛,在酸鱼发酵产品也检测到关键醛类风味化合物[23]。最佳工艺条件下,P.pentosaceus菌体代谢活性最强,可高效分泌肽酶,将大分子肽分解为游离氨基酸,P.pentosaceus在发酵体系中占据绝对优势,抑制腐败菌生长,减少醛类物质的降解,通过Ehrlich途径由缬氨酸等氨基酸降解而产生3-甲基丁醛[24],平均含量为12.79 μg/mL,是发酵中期特征香气的主要贡献者。苯甲醛含量相对稳定,源于苯丙氨酸降解和微生物发酵产生的,为鱼露贡献坚果香,被认为是日本酱油中具有高气味活性值的关键挥发物之一[25],然而对酱油最终质量影响不大。
酯类的形成源于醇类和酸类在酯化酶作用下的酯化和脱水[26],具有果香、花香等愉悦香气,本研究9种酯类化合物呈现持续下降趋势,5 d总含量高达70.52 μg/mL,20 d骤降到1.02 μg/mL。亚油酸甲酯平均含量42.75 μg/mL,是酯类中绝对主导的化合物,可能来源于原料中的脂质组分。甲酸异丙酯平均含量10.94 μg/mL具有典型的果香气息,是发酵前期的重要风味贡献者,本研究结果与Zhao等[27]的结果相似。
酮类源于脂肪酸β氧化与脂肪的氧化[28],通常具有奶油香、果香或烤香,且在多种发酵肉制品、水产品中普遍存在。本研究全发酵周期均有检出酮类化合物,丙酮、1-羟基-2-丙酮在15~20 d含量最高。丙酮作为微生物代谢的通用中间产物,在发酵罗非鱼香肠[29]中有检出,其稳定的含量变化反映了P.pentosaceus代谢活动的持续性。值得注意的是,本研究检出C3~C6的短链酮类,未检测到Li等[30]报道的长链酮类,推测与P.pentosaceus的代谢途径特异性相关。
酸类含量普遍较低,主要为乙酸、异丁酸、异戊酸等短链脂肪酸。由乳酸菌进行脂肪酸氧化与丙氨酸代谢产生,因风味阈值较高,其对鱼露整体风味的贡献相对较小,这与文献报道结论[30]一致。
芳香族化合物在低盐鱼露发酵过程中产量最大,多数在发酵中期达到峰值。最优工艺下,原料中添加的葡萄糖与蛋白质水解产生的氨基酸发生美拉德反应或氨基酸的热分解,生成2-甲基吡嗪、吡嗪等衍生物,为低盐鱼露贡献了氨和坚果味,37 ℃恒温发酵为美拉德反应提供温和动力,防止高温产生焦苦味。吡嗪类、苯类化合物含量均较低,具有烤香和花香气息,但因含量低于风味阈值,仅对整体风味起到辅助修饰作用。
本研究检测到的挥发性物质与泰国鱼露[2]、日本酱油[31]关键风味成分相似,先前的研究表明,中国传统的高盐液态酱油具有焦糖状、烤焦、焦香特征[32],Ding等[33]报道的关键风味物质1-辛烯-3-醇与本研究相似。发酵10 d时此时醇类(103.49 μg/mL)与酮类(24.78 μg/mL)均处于峰值,3-甲基-1-丁醇、1-辛烯-3-醇与丙酮协同构建鱼露发酵中期以麦芽香为主、蘑菇香与果香为辅的特征风味轮廓。20 d时2类物质含量显著下降(醇类4.20 μg/mL、酮类11.30 μg/mL,P<0.05),仅保留了高稳定性成分,风味以微弱果香为主,整体强度下降。
2.9 通过GC-MS和GC-IMS分析挥发性风味化合物
通过GC-MS和GC-IMS方法分析,共鉴定出136种挥发性化合物,其中GC-MS单独鉴定55种,GC-IMS单独鉴定62种,两者共同鉴定的化合物有19种(图5-a)。在化合物类别分布中(图5-b),醇类、酸类、酮类、醛类、酯类、吡嗪类、烃类、苯类化合物及其他化合物呈现不同检出特征:醛类、酮类在GC-IMS中检出数量显著高于GC-MS,醇类、酯类在2种方法中检出数接近,体现了GC-MS与GC-IMS在挥发性化合物鉴定上的方法互补性。
基于上述分析,P.pentosaceus发酵鱼露过程的风味演变可分为3个阶段:发酵前期(5 d)以酯类化合物为主导(70.52 μg/mL),辅以醛类和酮类,整体风味呈现浓郁的果香和青草香,主要来源于原料脂质的初步降解和甲酯化反应。发酵中期(10 d)醇类和醛类化合物达到峰值(分别为103.49 μg/mL和34.45 μg/mL),酯类急剧下降,风味特征转变为以麦芽香、香蕉香和坚果香为主,是P.pentosaceus代谢活性最高的阶段,也是风味形成的关键时期。发酵后期(15~20 d)各类化合物含量普遍下降,20 d时总挥发性化合物含量不足5 d的10%,风味逐渐趋于平和,主要保留苯甲醛等稳定化合物的特征香气。与Li等[30]发现中期发酵(15 d)为风味最佳时期的结论不同,本研究表明P.pentosaceus发酵鱼露的最佳风味时期为10 d,此时醇类和醛类等关键风味物质含量最高,且酯类降解尚未完全,风味物质组成最为均衡,与电子鼻检测到的广谱醇类、芳香族化合物信号(图1-a)、电子舌检测到20 d鲜味突出但中期风味均衡的结果一致,最终在发酵10 d形成最优风味期。
3 结论
本研究采用响应面法明确P.pentosaceus发酵罗非鱼加工副产物制备低盐鱼露的最佳工艺为料液比1∶3、加菌量10%、发酵温度37 ℃、pH值6.5,该工艺下鱼露发酵周期缩短,总氮与AA-N含量显著提升并满足相关品质标准。GC-MS与GC-IMS联用技术揭示了风味物质的动态变化规律,共鉴定出183种挥发性化合物,涵盖醛、醇、酮、酯等9大类,其中13种化合物为2种方法共同检出,凸显技术互补优势。发酵中期(10 d)醇类与醛类达峰,形成麦芽香-蘑菇香-果香的核心风味轮廓,为品质最佳时期。关键风味化合物包括3-甲基-1-丁醇、1-辛烯-3-醇、苯甲醛等,其形成与原料脂质氧化、氨基酸降解及P.pentosaceus特异性代谢密切相关,定向驱动特征风味物质的生成与平衡。本研究不仅为罗非鱼加工副产物的高值化利用提供了新路径,也为低盐发酵鱼露的工艺优化与风味调控提供了科学参考,但同时在菌株代谢调控机制方面存在不足,需进一步研究。
[1] Russo G L, Langellotti A L, Genovese A, et al.Volatile compounds, physicochemical and sensory characteristics of Colatura di Alici, a traditional Italian fish sauce[J].Journal of the Science of Food and Agriculture, 2020, 100(9):3755-3764.
[2] Lapsongphon N, Yongsawatdigul J, Cadwallader K R.Identification and characterization of the aroma-impact components of Thai fish sauce[J].Journal of Agricultural and Food Chemistry, 2015, 63(10):2628-2638.
[3] 李琰, 李文静, 李春生, 等.基于微生物菌群调控的枯草芽孢杆菌改善低盐发酵鱼露品质作用机制[J].食品科学, 2023, 44(18):58-67.Li Y, Li W J, Li C S, et al.Bacillus subtilis B-2 improved the quality of low-salt fermented fish sauce through regulating the microbial community[J].Food Science, 2023, 44(18):58-67.
[4] 段丽瑞, 张巧, 李永成.以罗非鱼加工废弃物为原料生产鱼鲜酱油的工艺研究[J].中国酿造, 2023, 42(4):228-233.Duan L R, Zhang Q, Li Y C.Production technology of fish soy sauce with tilapia processing waste as raw material[J].China Brewing, 2023, 42(4):228-233.
[5] Li C S, Zhao Y, Wang Y Q, et al.Contribution of microbial community to flavor formation in tilapia sausage during fermentation with Pediococcus pentosaceus[J].LWT, 2022, 154:112628.
[6] Xu Y S, Xia W S, Yang F, et al.Protein molecular interactions involved in the gel network formation of fermented silver carp mince inoculated with Pediococcus pentosaceus[J].Food Chemistry, 2010, 120(3):717-723.
[7] Xu X X, Bi S, Lao F, et al.Comprehensive investigation on volatile and non-volatile metabolites in broccoli juices fermented by animal- and plant-derived Pediococcus pentosaceus[J].Food Chemistry, 2021, 341(P1):128118.
[8] Martino M E, Maifreni M, Marino M, et al.Genotypic and phenotypic diversity of Pediococcus pentosaceus strains isolated from food matrices and characterisation of the penocin operon[J].Antonie van Leeuwenhoek, 2013, 103(5):1149-1163.
[9] Yu H Y, Guo W, Xie T, et al.Aroma characteristics of traditional Huangjiu produced around Winter Solstice revealed by sensory evaluation, gas chromatography-mass spectrometry and gas chromatography-ion mobility spectrometry[J].Food Research International, 2021, 145:110421.
[10] Gu S, Zhang J, Wang J, et al.Recent development of HS-GC-IMS technology in rapid and non-destructive detection of quality and contamination in agri-food products[J].TrAC Trends in Analytical Chemistry, 2021, 144:116435.
[11] 吴朝朝. 利用淡水鱼加工副产物速酿低盐鱼露工艺和风味的研究[D].南昌:南昌大学, 2015.Wu Z Z.Study on the technology and flavor of low-salt fish sauce usingby-products of freshwater fish[D].Nanchang:Nanchang University, 2015.
[12] Yao W S, Ma S Y, Wu H Y, et al.Flavor profile analysis of grilled lamb seasoned with classic salt, chili pepper, and cumin (Cuminum cyminum) through HS-SPME-GC-MS, HS-GC-IMS, E-nose techniques, and sensory evaluation on Sonit sheep[J].Food Chemistry, 2024, 454:139514.
[13] Zhao S, Niu C T, Yang X H, et al.Roles of sunlight exposure on chemosensory characteristic of broad bean paste by untargeted profiling of volatile flavors and multivariate statistical analysis[J].Food Chemistry, 2022, 381:132115.
[14] 威海浦源食品有限公司, 东莞市永益食品有限公司, 宁波海之源生物科技有限公司.鱼露质量通则[Z].国家市场监督管理总局;国家标准化管理委员会.2023:12.National Technical Committee for Standardization of Condiments (SAC/TC 398).General Rules for the Quality of Fish Sauce:GB/T 42463—2023[S].China Standards Press, 2023.
[15] Yin X Y, Lv Y C, Wen R X, et al.Characterization of selected Harbin red sausages on the basis of their flavour profiles using HS-SPME-GC/MS combined with electronic nose and electronic tongue[J].Meat Science, 2021, 172:108345.
[16] Ma X X, Sang X, Yan C Y, et al.Dynamics of bacterial composition and association with quality formation and biogenic amines accumulation during fish sauce spontaneous fermentation[J].Applied and Environmental Microbiology, 2022, 88(13):e00690-22.
[17] Chen J, Wang W W, Jin J H, et al.Characterization of the flavor profile and dynamic changes in Chinese traditional fish sauce (Yu-lu) based on electronic nose, SPME-GC-MS and HS-GC-IMS[J].Food Research International, 2024, 192:114772.
[18] Li X R, Wang K, Yang R W, et al.Mechanism of aroma compounds changes from sea cucumber peptide powders (SCPPs) under different storage conditions[J].Food Research International, 2020, 128:108757.
[19] Pires E J, Teixeira J A, Br nyik T, et al.Yeast:The soul of beer’s aroma—a review of flavour-active esters and higher alcohols produced by the brewing yeast[J].Applied Microbiology and Biotechnology, 2014, 98(5):1937-1949.
[20] Thongsomboon W, Bunyatratchata A, Vongkampang T, et al.Dynamic changes in Thai-style fermented fish:Low-salt, short fermentation with autochthonous starter culture[J].LWT, 2023, 188:115427.
[21] Wang Y Q, Li C S, Zhao Y Q, et al.Novel insight into the formation mechanism of volatile flavor in Chinese fish sauce (Yu-lu) based on molecular sensory and metagenomics analyses[J].Food Chemistry, 2020, 323:126839.
[22] Dajanta K, Apichartsrangkoon A, Chukeatirote E.Volatile profiles of thua nao, a Thai fermented soy product[J].Food Chemistry, 2011, 125(2):464-470.
[23] Wang Z H, Xu Z, Sun L M, et al.Dynamics of microbial communities, texture and flavor in Suan zuo yu during fermentation[J].Food Chemistry, 2020, 332:127364.
[24] Smit B A, Engels W J M, Smit G.Branched chain aldehydes:Production and breakdown pathways and relevance for flavour in foods[J].Applied Microbiology and Biotechnology, 2009, 81(6):987-999.
[25] Lee S M, Seo B C, Kim Y-S.Volatile compounds in fermented and acid-hydrolyzed soy sauces[J].Journal of Food Science, 2006, 71(3):C146-C156.
[26] Zhang X, Wei J P, Zhao S Y, et al.Flavor differences between commercial and traditional soybean paste[J].LWT, 2021, 142:111052.
[27] Zhao C C, Tian Z Y, Yi J J, et al.Characterization and correlation of bacterial community and volatile flavor compounds in Xiguajiang, a Chinese traditional fermented condiment[J].Food Research International, 2022, 162:111904.
[28] Olesen P T, Stahnke L H, Talon R.Effect of ascorbate, nitrate and nitrite on the amount of flavour compounds produced from leucine by Staphylococcus xylosus and Staphylococcus carnosus[J].Meat Science, 2004, 68(2):193-200.
[29] Zhao Y, Wang Y Q, Li C S, et al.Novel insight into physicochemical and flavor formation in naturally fermented tilapia sausage based on microbial metabolic network[J].Food Research International, 2021, 141:110122.
[30] Li C S, Li L H, Chen S J, et al.Volatile flavor improvement and spoilage microorganism inhibition in low-salt fish sauce (Yulu) by salt-tolerant Bacillus subtilis[J] 2023, 9(6):515.
[31] Kaneko S, Kumazawa K, Nishimura O.Studies on the key aroma compounds in raw (unheated) and heated Japanese soy sauce[J].Journal of Agricultural and Food Chemistry, 2013, 61(14):3396-3402.
[32] Wang X J, Guo M Y, Song H L, et al.Characterization of key aroma compounds in traditional Chinese soy sauce through the molecular sensory science technique[J].LWT, 2020, 128:109413.
[33] Ding A Z, Zhu M, Qian X Q, et al.Effect of fatty acids on the flavor formation of fish sauce[J].LWT, 2020, 134:110259.